Dragana Cvetkovi}
Dmitar Laku{i}
Gordana Mati}
Aleksandra Kora}
Slobodan Jovanovi}

Dragana Cvetkovi}
Dmitar Laku{i}
Gordana Mati}
Aleksandra Kora}
Slobodan Jovanovi}
Zavod za uxbenike, Beograd
Recenzenti
prof. dr Vesna Koko, Biolo{ki fakultet, Beograd
prof. dr Oliver Stojkovi}, Medicinski fakultet, Beograd
Drag ica Popovi}, prof. biologije, ^etrnaesta beogradska gimnazija, Beograd
Urednik
T amar a Baj eta
Odgovorni urednik
dr Tatjana Ko sti
Glavni urednik
dr Milo rad Marjanovi
Za izdava~a
dr Milo rad Marjanovi , v. d. direktora
CIP,
37.016:57(075.3) : [ ] IV - / ... [ .]. - 8. . - : , 2020 ( : ). - 259 . : . ; 27 cm
3.000. - : . 254256. - : . 257-258.
ISBN 978-86-17-20261-1
1. , , 1961- [ ]
COBISS.SR-ID 283151372
Ministar prosvete i sporta Republike Srbije svojim re{ewem broj 650-02-00076/2005-06 od 28. jula 2005. godine odobrio je ovaj uxbenik za izdavawe i upotrebu u IV razredu gimnazije op{teg smera.
ISBN 978-86-17-20261-1
© , (2005–2020) , , ,
(A. Kora}) Uvod ..........................................................................................................................................................10
Na~ini razmno`avawa `ivotiwa ...................................................................................................11
Oogeneza – op{ta {ema nastanka jajne }elije............................................................................14
Spermatogeneza – op{ta {ema nastanka spermatozoida
Stupwevi oplo|ewa .............................................................................................................................19
Brazdawe – stvarawe vi{e}elijskog embriona
Gastrulacija – stvarawe slojevitog embriona ............................................................................23
Nastanak osovinskih organa – crevne cevi, notohorde, nervne cevi
Nasle|ivawe
Genske mutacije
Hromozomske
Koliko su mutacije ~este
[ta je geneti~ka varijabilnost i kako mo`e da se izmeri
Geneti~ka
Istra`ivawe genoma ~oveka ...........................................................................................................72
Analiza rodoslovnih stabala .........................................................................................................73 Primeri obrazaca nasle|ivawa ..........................................................................................................73
Analiza hromozoma ............................................................................................................................75
Geneti~ko testirawe i savetovawe ................................................................................................76
I PONA[AWE ...................................................................................................................77
NUKLEINSKE KISELINE – STRUKTURA I
ULOGA ......................................................................................................................83
Primarna struktura nukleinskih kiselina .............................................................................83
Sekundarna struktura nukleinskih kiselina ..........................................................................84
Hromatin ................................................................................................................................................86
Biolo{ka uloga nukleinskih kiselina ......................................................................................87 PROTEINI – STRUKTURA I BIOLO[KA ULOGA ................................................92
Primarna struktura proteina .......................................................................................................92
Prostorna struktura proteina ......................................................................................................93
Biolo{ka uloga proteina ...............................................................................................................95
GENOM I GEN ...................................................................................................................................98
[ta je genom? .......................................................................................................................................98
[ta je gen? ..........................................................................................................................................100
Replikacija DNK – semikonzervativan proces .....................................................................104
Proces replikacije DNK ...............................................................................................................104
Transportne RNK ..............................................................................................................................112
Tok translacije .................................................................................................................................112
Klonirawe DNK ................................................................................................................................122
Odre|ivawe primarne strukture DNK ......................................................................................123
Primena geneti~kog in`ewerstva ..............................................................................................123
Eti~ki i ekolo{ki problemi .......................................................................................................125
(D. Cvetkovi})
o evoluciji ..........................................................................................................................131
Zna~aj evolucionih istra`ivawa ...............................................................................................133
Evolucija i medicina ........................................................................................................................133 Evolucija i poqoprivreda .................................................................................................................133
Evolucija i za{tita `ivotne sredine ...............................................................................................134
Lamarkova teorija ............................................................................................................................135 Darvinova teorija ............................................................................................................................136
Prirodna selekcija i nasledna varijabilnost .................................................................................137
Geneti~ki drift (geneti~ka slu~ajnost) ............................................................................................140
[ta su biolo{ke vrste ....................................................................................................................147
Kako nastaju vrste
Mehanizmi reproduktivne izolacije ................................................................................................148
postanka vrsta .......................................................................................................................149
Savremena teorija postanka `ivota ...........................................................................................151 Prvobitna Zemqa................................................................................................................................151
svet" i prve }elije ...................................................................................................................152
Kako se odre|uje starost stena i fosila .....................................................................................156
Izumirawe vrsta ...............................................................................................................................160
Australopitecine
Na{ rod – Homo ................................................................................................................................164
Spretni ~ovek ....................................................................................................................................164
Uspravni ~ovek ..................................................................................................................................164
Arhai~ni ~ovek ..................................................................................................................................164
Savremeni ~ovek ................................................................................................................................165
Biologija i kultura u evoluciji ~oveka ....................................................................................166
Biohemijski ciklusi.........................................................................................................................211
Ciklus azota .......................................................................................................................................212
Azotofiksacija ..................................................................................................................................212
Sudbina azota u zemqi{tu ..................................................................................................................213
Kru`ewe ugqenika ............................................................................................................................214
Kru`ewe kiseonika ..........................................................................................................................215
Kru`ewe vode ....................................................................................................................................216
RAZVOJ I EVOLUCIJA EKOSISTEMA ..........................................................................217
RAZNOVRSNOST EKOSISTEMA NA[E ZEMQE ...................................................221
Osnovni abiogeni ~inioci raznovrsnosti ekosistema .......................................................221
Pregled osnovnih tipova ekosistema na{e zemqe .................................................................224
...............................................................................................229
(S. Jovanovi})
ZA[TITA I UNAPRE\IVAWE @IVOTNE SREDINE .......................................230
Ekolo{ke promene u prirodi nastale delovawem ~oveka ...................................................231
Promene fizi~kih i hemijskih karakteristika `ivotne sredine ..................................233
Zaga|ivawe i izvori zaga|ivawa vazduha ..........................................................................................233
Zaga|ivawe i izvori zaga|ivawa vodâ ...............................................................................................235
Zaga|ivawe i izvori zaga|ivawa zemqi{ta ......................................................................................236
Promene sastava `ivog sveta .............................................................................................................238
Uno{ewe stranih vrsta u podru~ja u kojima ih ranije nije bilo i ekolo{ke posledice ..................239
Proces domestifikacije zemqi{ta, biqaka i `ivotiwa ..................................................................240
Procesi urbanizacije i industrijalizacije .....................................................................................
Geneti~ki i zdravstveni efekti naru{ene i zaga|ene `ivotne sredine ..........................................241
Sistemi pra}ewa stawa `ivotne sredine ..........................................................................................244
Ekolo{ke osnove prostornog planirawa i ure|ewa prostora ...........................................................244
Revitalizacija i rekultivacija ekosistema i predela .....................................................................245
ZA[TITA PRIRODE ...................................................................................................................247
Problemi ugro`enosti i za{tite `ive i ne`ive prirode ...........................................247
Savremeni pristupi i mogu}nosti za{tite ugro`ene flore, faune i `ivotnih zajednica ...................................................................................................248
RE^NIK STRU^NIH TERMINA ..........................................................................................................254
Ni{ta u prirodi nije tako fascinantno kao nastanak novog `ivog bi}a. Jedna od osnovnih odlika `ivih bi}a upravo je sposobnost da razmno`avawem dobijaju potomstvo kojim reprodukuju sebe same, odnosno vrstu kojoj pripadaju. Time se obezbe|uje kontinuitet `ivota. Ukoliko bi organizmi u okviru jedne vrste bili reproduktivno neuspe{ni, ta vrsta bi se vremenom smawivala po broju jer bi weni ~lanovi nestajali umirawem od starosti, bolesti, nesre}nim slu~ajem ili od predatora –dok ne bi izumrla, nestala iz ekosistema. Po osnovnom zakonu biologije, `ivo bi}e ne mo`e nastati ni iz ~ega drugog, osim od postoje}eg `ivog bi}a.
Biologija razvi}a prou~ava na~ine razmno`avawa, embrionalno i posleembrionalno razvi}e, rast i starewe. Kori{}ewem metoda embriologije, citologije, biohemije i molekularne biologije ona opisuje stupweve razvi}a, strukture koje nastajawem i promenama vode formirawu odraslog organizma i molekulska de{avawa tokom tih promena. Znawa ste~ena u biologiji razvi}a koriste se u razja{wavawu postanka razli~itih vrsta, a u medicini imaju prakti~nu primenu (ve{ta~ko oplo|ewe, regeneracija, klonirawe).

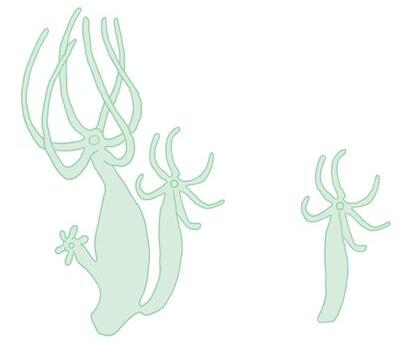
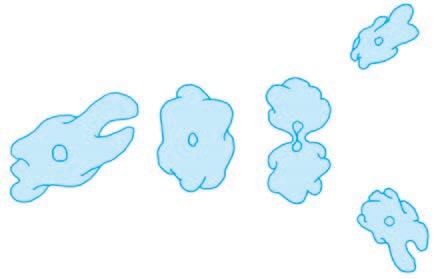
Iako je raznovrsnost `ivotiwskih vrsta velika, postoje dva osnovna na~ina wihovog razmno`avawa – bespolno i polno. Bespolno razmno`avawe karakteristi~no je za mawi broj vrsta i ne ukqu~uje razmenu geneti~kog materijala. Organizmi koji nastaju na taj na~in ne razlikuju se od svojih roditeqa ni po nasle|u (genotipski), ni po izgledu (fenotipski) i mogu se smatrati klonovima. Neki od na~ina bespolnog razmno`avawa su: deobom (postoje}a jedinka se deli i nastanu dve nove), pupqewem (na jednom delu tela jedinke deobom postoje}ih }elija formira se izdanak ili pupoqak koji izraste u nov organizam – i kada se on odvoji postane nova jedinka) i regeneracijom (ukoliko se otkinu delovi jedinke, svaki od tih delova – fragmenata –sposoban je da nadoknadi, regeneri{e deo koji nedostaje i stvori novu jedinku).
morska zvezda
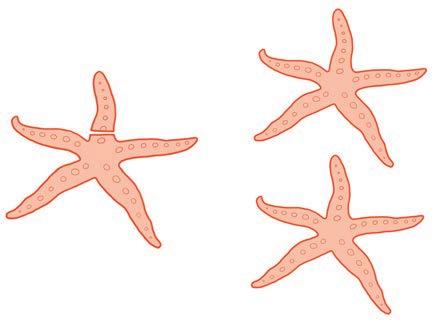
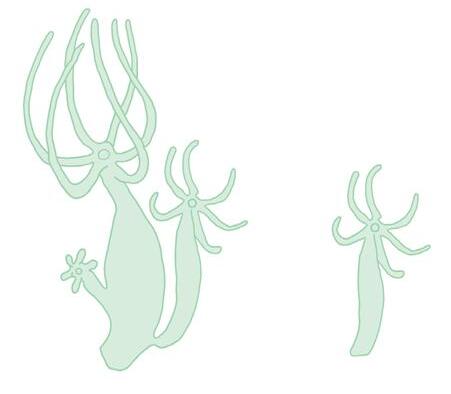
Bespolno razmno`avawe: a) deobom – ameba; b) pupqewem – hidra; v) regeneracijom – morska zvezda
Polno razmno`avawe odlikuje ve}inu `ivotiwskih vrsta. U polnim organima stvaraju se polne }elije (gameti) specijalizovanom deobom – mejozom. Ona dovodi do redukcije broja hromozoma karakteristi~nih za vrstu na polovinu i pove}ava raznovrsnost polnih }elija, a time i mogu}nost wihovog kombinovawa u razli~ite jedinke procesom razmene geneti~kog materijala. Postoje dva tipa gameta – mu{ki i `enski. Nov organizam nastaje wihovim
jajna }elija zigot spermatozoid + (n)(n) (2n)
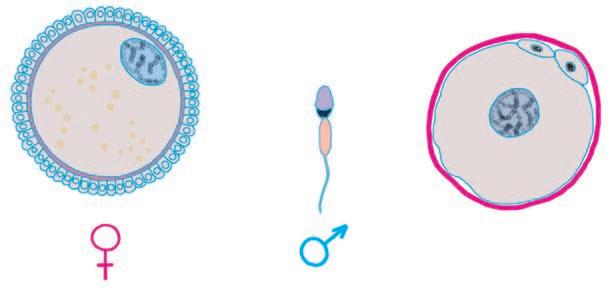
Polno razmno`avawe: `enska i mu{ka polna }elija se spajaju u zigot. n – broj hromozoma
spajawem u zigot, koji ponovo dobija diploidan broj hromozoma i kreira se jedinstvena kombinacija gena, odnosno osobina za svaku jedinku ponaosob. Zigot se zatim mitoti~ki deli –brazda – na ve}i broj }elija (blastomera) i stvara blastulu. U woj }elije gastrulacijom po~iwu da se kre}u i grupi{u u tri osnovna tkiva – gastrule. Ta tkiva organogenezom formiraju organe embriona, a embrion raste do momenta ro|ewa, odnosno izlegawa.
Kod odre|enih vrsta insekata (mravi, p~ele, ose), nekih riba, vodozemaca i gmizavaca potomak se mo`e razviti iz neoplo|ene jajne }elije –partenogenezom. Kod p~ela, mu`jaci trutovi razvijaju se partenogenetski iz neoplo|enog jajeta, a `enke – iz oplo|enog.
U `ivotiwskom svetu postoje vrste koje uporedo koriste oba na~ina razmno`avawa, na primer ki{na glista ili hidra.
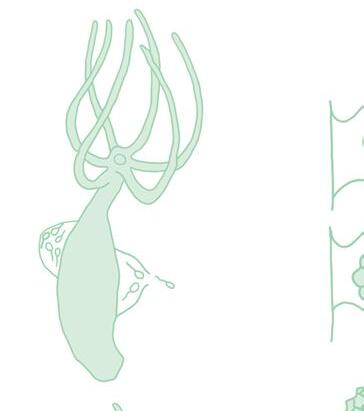
spermatozoidi
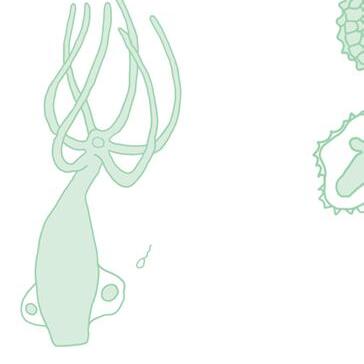
jajna }elija
oplo|ewe
Polno razmno`avawe kod hidre
Me|u `ivotiwama razdvajawe jedinki na polove u okviru vrste (polni dimorfizam) ima svoju biolo{ku cenu. Energija se ula`e u pravilno formirawe spoqa{weg izgleda polova (sekundarne polne osobine), polnih organa i polnih }elija. Zatim, polovi se moraju pona{ati prema odre|enim pravilima (reproduktivno pona{awe) po kojima se potencijalni partner pronalazi i privla~i da bi do{lo do parewa i oplo|ewa. Osim toga, potrebno je i voditi brigu o mladuncima (roditeqsko pona{awe).
Zato je neophodna uskla|enost mu`jaka i `enki – tzv. reprodukcioni tajming. On omogu}uje istovremeno sazrevawe spermatozoida i jajne }elije. Da bi potomstvo uspe{no pre`ivelo, reprodukcija se „pode{ava“ odre|enom dobu godine, svetlosnom i temperaturnom re`imu, odnosno mawe-vi{e konstantnim uslovima sredine. U tom pogledu se koriste razli~ite strategije. Neke vrste se vra}aju na mesto nastanka (lososi, pastrmke), neke su reproduktivno aktivne samo tokom odre|enog doba godine, a neke same kreiraju sredinu za razvoj embriona (embrionalni omota~i ptica i sisara).
Pronala`ewe i prepoznavawe potencijalnih partnera iste vrste tako|e je izazov. Vrste koriste razli~ite strategije, sinteti{u specifi~ne produkte koji privla~e – feromone, stvaraju vidqive ukrasne detaqe koji, tako|e, privla~e (kreste, perje i sl.), pevaju specifi~ne melodije. Mu`jaci ~esto tro{e ogromnu energiju da bi privukli `enku i pridobili je za parewe. Interesantno je da su u `ivotiwskom carstvu `enke uglavnom neupadqive, dok mu`jaci imaju upadqive ukrasne detaqe i pona{awe. Da li je i u na{oj vrsti tako? Diskutujte na ~asu o seksualnom pona{awu na{e vrste!
Pitawa i zadaci
1. [ta prou~ava biologija razvi}a?
2. Koji su na~ini razmno`avawa `ivotiwa?
3. Navedite razlike bespolnog i polnog na~ina razmno`avawa?
RAZMISLITE!
1. Kolika je biolo{ka cena bespolnog, a kolika polnog razmno`avawa?
2. Da li je partenogeneza mogu}a u na{oj vrsti?
Pki{na glista
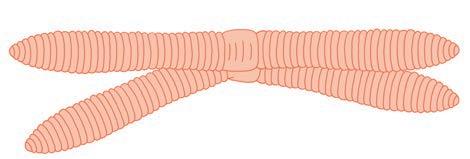
Polno razmno`avawe kod ki{ne gliste. Iako su hermafroditi, oplo|ewe se odigrava izme|u dve jedinke.
olne }elije – gameti stvaraju se u polnim organima jedinki procesom gametogeneze Postoje dva tipa gameta: `enski i mu{ki. @enski gameti (jajne }elije) nastaju u ovarijumima (jajnicima), a mu{ki (spermatozoidi) u testisima (semenicima). Ovarijumi i testisi kod najve}eg broja `ivotiwa razvijaju se u razli~itim jedinkama – `enkama, odnosno mu`jacima (polni dimorfizam). Samo mali broj `ivotiwa razvija oba tipa polnih organa u jednoj jedinki. To je hermafroditizam ili dvopolnost. Hermafroditizam je karakteristi~an za ki{nu glistu, metiqa, pantqi~aru, pu`a i neke druge `ivotiwe. Iako jedno telo stvara oba tipa gameta, oplo|ewe se naj~e{}e obavqa izme|u dve jedinke (samooplo|ewe je znatno re|e). Tako vrsta obezbe|uje raznovrsnost jedinki.
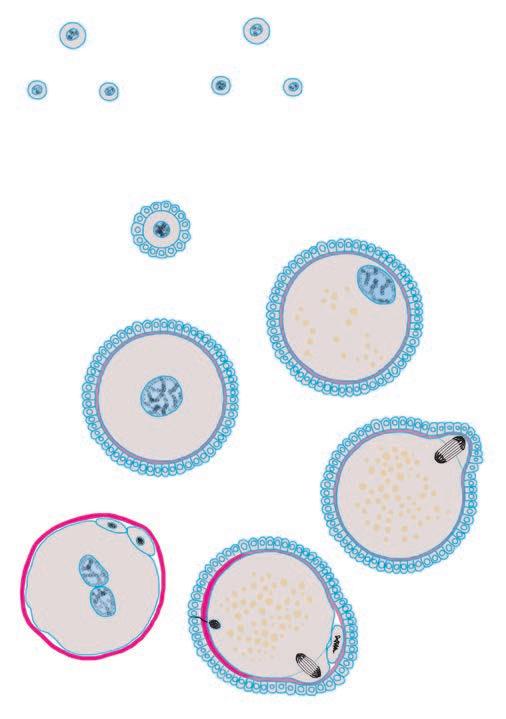
Gametogenetski proces kojim nastaju jajne }elije naziva se oogeneza, a proces u kojem nastaju spermatozoidi – spermatogeneza. Ti procesi ukqu~uju }elijske deobe – mitoti~ke i mejoti~ke – i specifi~ne citolo{ke promene, tako da dobijeni gameti imaju: haploidan broj hromozoma (redukciona deoba), jedinstvenu kombinaciju osobina u genomu (hromozomske rekombinacije) i }elijske specijalizacije koje omogu}uju funkcionalnost (npr., jajna }elija ima `umance, a spermatozoid – bi~). @enski i mu{ki gamet naj~e{}e se veoma razlikuju po veli~ini i izgledu (anizogameti), a samo kod malog broja vrsta oni se stvaraju kao jednaki (izogameti). Jajne }elije su naj~e{}e krupne i nepokretne, dok su spermatozoidi sitni i pokretqivi.
]elije od kojih procesima gametogeneze nastaju gameti ne stvaraju se u samim polnim organima, ve} na drugom mestu u embrionu, i „naseqavaju“ te polne organe u ranom razvi}u. Kod nekih vrsta gametogenetski procesi mogu zapo~eti u embrionu, ali se prekidaju ro|ewem i nastavqaju tek kada jedinka postane polno zreo adult. Nastavqawe i odvijawe oogeneze i spermatogeneze kontrolisano je hormonima.
Oogeneza – op{ta {ema nastanka jajne
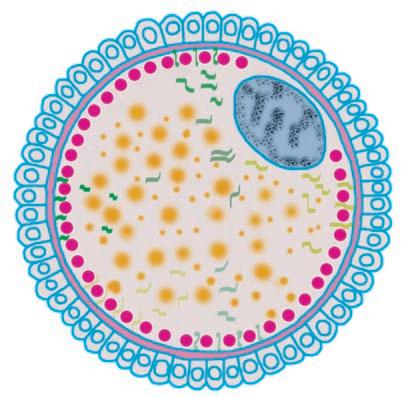
U `enskom embrionu oogeneza zapo~iwe izvornim, stem }elijama – oogonijama, koje se mitoti~ki dele i uve}avaju broj. Po dostizawu odre|enog broja sve oogonije ulaze u prvu mejoti~ku deobu, rastu i diferenciraju se kao primarne oocite. U wima dolazi do rekombinacije hromozoma. @enski mladunci ve}ine vrsta ra|aju se sa odre|enim brojem primarnih oocita, koje su zaustavqene u prvoj mejoti~koj deobi. Tu deobu }e nastaviti tek po dostizawu polne zrelosti jedinke, u odre|enim ciklusima.
Prva mejoti~ka deoba ne odvija se ravnomerno. U woj nastaju dve }elije veoma razli~ite po veli~ini: sekundarna oocita, koja zadr`ava najve}i deo citoplazme, i prvo polarno telo, koje ima tanak citoplazmati~ni prsten oko nukleusa. Sekundarna oocita ulazi u drugu mejoti~ku deobu i, dele}i se (ponovo nejednako), daje haploidnu, zrelu jajnu }eliju i drugo polarno telo. I u drugoj mejoti~koj deobi, kod odre|enih vrsta ona se mo`e zaustaviti – i nastaviti deobu tek po ulasku spermatozoida.
Uporedo s deobama u oogenezi sinteti{u se `umancetni materijal (za ishranu embriona) i informacioni molekuli razvi}a (maj~inska uputstva za razvi}e).
Oogenezom od jedne oogonije nastaje samo jedna funkcionalna, zrela jajna }elija. Jajna }elija mo`e biti zaustavqena u fazama deobe. Ona u citoplazmi nagomilava hranqive materije i informacione molekule razvi}a.
Iako jajne }elije `enki `ivotiwa nastaju na opisani na~in, postoji velika raznovrsnost me|u vrstama kad je u pitawu broj produkovanih jajnih }elija, wihova veli~ina i izgled. U jednom ciklusu oogeneze riba stvori pet miliona, `aba hiqadu i pet stotina, zmija dvanaest, a `ena – samo jednu jajnu }eliju. Kada je re~ o veli~ini, jajna }elija `ene iznosi 0,1 mm, `abe oko 2 mm, a jajna }elija ptica, nama dobro poznato jaje, oko 40 mm
Prema izgledu, jajne }elije su naj~e{}e loptaste ili elip-
ovarijum
oogonije
mitoti~ko umno`avawe
folikularne }elije
primarne oocite
vitelinski omota~
drugo polarno telo spermatozoid
zigot
fertilizacioni
prvo polarno telo
mejoti~ka deoba
rast i prva
omota~ `umancetne granule
Oogeneza
druga mejoti~ka deoba se mo`e zavr{iti i po ulasku spermatozoida –sekundarna oocita
a) 0,1 mm
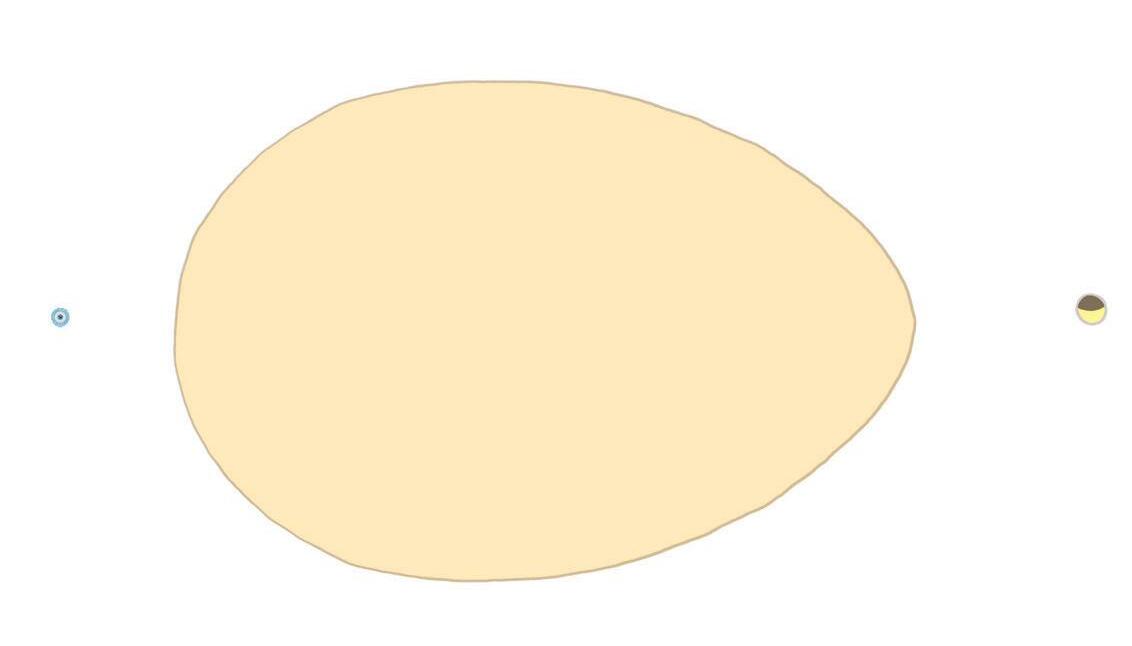
b) 40 mm
v) 2 mm
Razlike u veli~ini jajnih }elija `ene (a), koko{ke (b) i `abe (v)
soidne. Oko sebe stvaraju tawi ili debqi omota~ od ugqenih hidrata i proteina – vitelinski omota~ . Vitelinski omota~ sisara sadr`i 70% proteina, 20% heksoze, 3% sijalinske kiseline i 2% sulfata koji u prostoru grade trodimenzionalnu mre`u. Kod insekata i riba vitelinski omota~ se naziva horion. Membrana jajne }elije naj~e{}e nije ravna. Na woj postoje brojne kratke, prstolike evaginacije – mikroresice, kojima ona „zalazi“ u vitelinski omota~.
oocita
folikularne }elije
primarni folikuli
primordijalni folikul
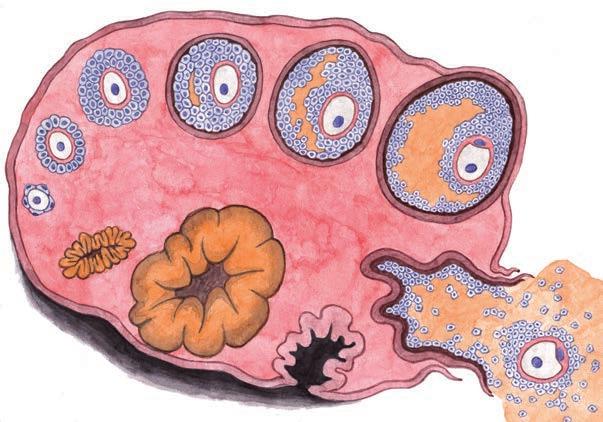
Folikulogeneza u ovarijumu sisara
sekundarni folikul
Ve}ina jajnih }elija oko sebe ima i pomo}ne –folikularne }elije. One {tite jajnu }eliju, kod nekih vrsta za wu stvaraju dodatne hranqive materije, a kod sisara i same se dele, rastu i diferenciraju, grade}i folikul (folikulogeneza). Osim vitelinskim omota~em i jednim slojem folikularnih }elija, jajne }elije mogu da budu za{ti}ene i slo`enijim, debqim strukturama poput belanceta i ~vrste mineralizovane quske kod ptica. Wih stvaraju }elije jajovoda i „obmotavaju“ jajne }elije tokom prolaska kroz jajovod.
Jajne }elije sadr`e veliku koli~inu citoplazme, u kojoj se mogu uo~iti hranqive materije, tj. `umance. Ono se sastoji od proteina i lipida deponovanih u obliku granula ili plo~ica. Prema koli~ini i rasporedu `umancetnog materijala u citoplazmi, razlikuje se nekoliko vrsta jajnih }elija:
– izolecitne,siroma{ne `umancetom, koje je relativno ravnomerno raspore|eno u citoplazmi (bodqoko{ci, sisari);
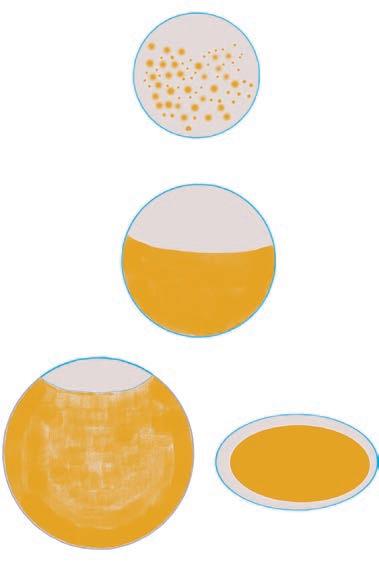
Vrste jajnih }elija po koli~ini `umanceta
– mezolecitne, sredwe bogate `umancetom, koje je uglavnom sme{teno u jednoj polovini citoplazme (vodozemci); ovaj specifi~an raspored `umanceta odre|uje i polarnost jajne }elije – polovina koja sadr`i `umance naziva se vegetativnom (jer slu`i za ishranu embriona), dok se druga koja sadr`i nukleus naziva animalnom (jer se iz we razvija `ivotiwa, odnosno embrion);
– telolecitne, izrazito bogate `umancetom (ptice, insekti); mala koli~ina citoplazme bez `umanceta u ovim jajnim }elijama potisnuta je na periferiju u vidu ostrvca (ptice) ili pojasa oko `umanceta (insekti); centralni polo`aj `umanceta u jajnoj }eliji insekata je toliko specifi~an da se one ozna~avaju kao centrolecitne
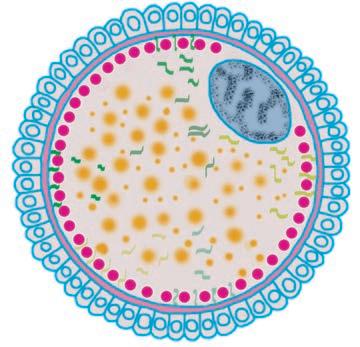
vitelusni omota~ folikularne }elije
kortikalne granule `umancetne granule
Sazrevawe jajne }elije ukqu~uje i sintezu `umancetnih granula, kortikalnih granula i informacionih molekula razvi}a (iRNK)
Pored `umanceta, od velikog su zna~aja sinteza i deponovawe informacionih molekula razvi}a. Oni se u citoplazmi jajne }elije raspore|uju na na~in karakteristi~an za vrstu i sadr`e sve va`ne podatke u vezi s tim kada }e se i kako odvijati razvi}e. Ve}ina iRNK se citoskeletom (aktinskim filamentima) transportuje do membrane }elije i vezuje za wu posebnim proteinima. Tako se ve} na nivou jajne }elije uspostavqa po larnost. Uz iRNK se nalaze i brojni ribozomi za kasniju sintezu proteina. Jajna }elija stvara i odre|en broj vezikula, koje postavqa neposredno ispod }elijske membrane. To su kortikalne granule. One imaju va`nu ulogu u oplo|ewu.
Tokom embrionalnog razvi}a izvorne, stem }elije spermatogeneze –spermatogonije – mitoti~kim deobama uve}avaju svoj broj, ali ne ulaze u mejozu. Za razliku od `enki, mladunci mu`jaci ra|aju se sa stem }elijama u gonadama i ~itavog `ivota ih zadr`avaju, tako da spermatogeneza ukqu~uje i mitozu stem }elija i wihov ulazak u mejozu. U adultnom, polno zrelom mu`jaku, odre|eni broj spermatogonija cikli~no i kontinuirano ulazi u spermatogenezu.
Spermatogeneza zapo~iwe vi{estrukim deobama spermatogonija. Sa mo mali broj wih ulazi u prvu mejoti~ku deobu kao primarne spermatocite. U wima dolazi do rekombinacije hromozoma i wihovim deqewem nastaju dve sekundarne spermatocite, koje odmah nastavqaju drugu mejoti~ku deobu i daju ~etiri ha ploidne spermatide . One trpe velike promene u izgledu tokom
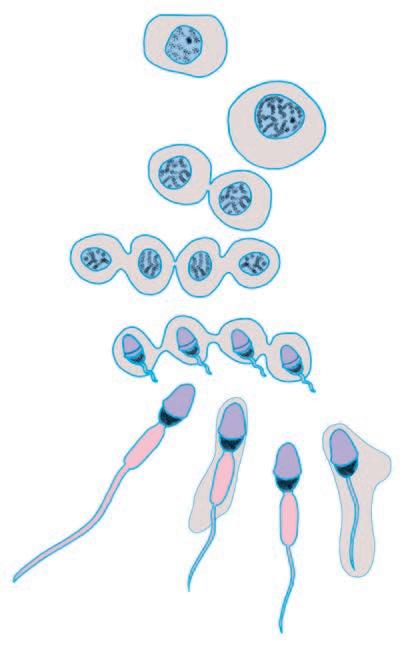
testis spermatogonija (mitoti~ke deobe)
primarna spermatocita (prva mejoti~ka deoba)
sekundarna spermatocita (druga mejoti~ka deoba)
spermatide spermiogeneza
Spermatogeneza
procesa spermiogeneze i postaju ~etiri spermatozoida. Spermiogenezom okruglaste spermatide sa mnogo citoplazme i velikim nukleusom postaju sitni, vretenasti spermato zoi di. Oni imaju karakteristi~nu gra|u: sastoje se od glave, vrata i, kod ve}ine vrsta, repa. Glava je elipsoidna, sa izuzetno malo citoplazme; u woj se nalazi kondenzovan nukleus, iznad kojeg je lizozom (akrozom). Vrat spermatozoida je kratak, sa parom centriola i spiralnim mitohondrijama. Rep je duga~ak bi~ koji polazi iz vratnih centriola. Spermatozoidi razli~itih vrsta su sli~ne du`ine, oko 60 μm, i stvaraju se u ogromnom broju (kod ~oveka sto miliona spermatozoida dnevno).
Spermatogenezom od jedne spermatogonije nastaju ~etiri funkcionalna, zrela spermatozoida. Spermatogeneza kod adultnog mu`jaka ukqu~uje mitoti~ko deqewe spermatogonija i mejoti~ku deobu spermatocita. Posle mejoze procesom spermiogeneze smawuje se veli~ina }elije i kondenzuje nukleus. Kod nekih vrsta spermatozoidi dobijaju i duga~ak bi~ za kretawe.
rep bi~ akrozom nukleus par centriola spiralne mitohondrije
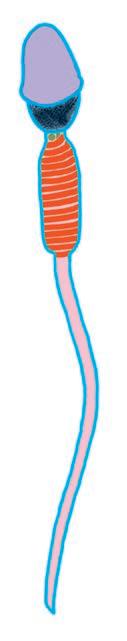
Gra|a spermatozoida
S obzirom na to da se polne }elije stvaraju kontinuirano tokom du`eg perioda `ivota, nepovoqni uslovi sredine i starost jedinke uti~u na wihov kvalitet. Poznato je da sa staro{}u koli~ina i kvalitet jajnih }elija opadaju i da se u oocitama de{avaju ne`eqene promene zbog sve ve}e zaga|enosti `ivotne sredine. To se odra`ava na potomstvo: sa staro{}u `enâ pove}ava se broj neuspe{nih trudno}a i nepravilnosti u razvoju embriona. Da bi se to izbeglo, `enama starijim od 35 godina preporu~uje se amniocenteza – kontrola }elija embriona iz amnionske te~nosti (videti u poglavqu Ekstraembrionalne strukture). Tim postupkom se ve} u prvim mesecima trudno}e mogu utvrditi eventualni poreme}aji u genomu.
Jajna }elija i spermatozoid nisu dugove~ne }elije. Traju, zapravo, veoma kratko i ukoliko do oplo|ewa ne do|e – propadaju. One se mogu dobro o~uvati zamrzavawem, tako da ih je mogu}e upotrebiti i posle vi{e decenija. [irom sveta postoje banke spermatozoida i jajnih }elija.
1. [ta je polni dimorfizam?
2. [ta je hermafroditizam?
3. Nabrojte osnovne karakteristike gameta.
4. Da li me|u vrstama `ivotiwa postoji razlika u veli~ini i broju gameta? Ako postoji, u ~emu se ona sastoji?
5. Koja je razlika izme|u oogeneze i spermatogeneze?
6. Koji tipovi jajnih }elija postoje?
7. Opi{ite gra|u spermatozoida. Pitawa i zadaci
Oplo|ewe (fertilizacija) jeste spajawe dve haploidne polne }elije (`enske i mu{ke) u jednu diploidnu }eliju – zigot. Ono se mo`e odvijati u spoqa{woj sredini –spoqa{we oplo|ewe, ili polnim organima `enke – unutra{we oplo|ewe
Spoqa{we oplo|ewe je karakteristi~no za ribe i vodozemce. @enke „pola`u“ jajne }elije u spoqa{wu sredinu (naj~e{}e je to voda), a mu`jaci preko wih izbacuju spermatozoide. Unutra{we oplo|ewe ~e{}e je kod kopnenih `ivotiwa (ptice, sisari, gmizavci, ali i neke ribe) jer se na taj na~in gameti i embrioni {tite od isu{ivawa. Pored toga, {tedi se na proizvodwi jajnih }elija jer se unutra{wim oplo|ewem znatno pove}ava uspe{nost oplodwe. Mu`jaci koji pripadaju vrstama s unutra{wim oplo|ewem poseduju kopulatorne polne organe kojima se spermatozoidi izlu~uju u polni kanal `enke. @ivotiwe s unutra{wim oplo|ewem razvile su tri strategije embrionalnog razvi}a i na~ina dolaska mladunaca na svet: – oviparnost (kod ptica, `aba i ve}ine beski~mewaka), kada `enke ubrzo posle oplo|ewa pola`u jaja u spoqa{wu sredinu, gde se embrionalno razvi}e zavr{ava izlegawem mladunaca; – viviparnost (kod ve}ine sisara), kada se jajna }elija posle oplo|ewa zadr`ava u majci koja hrani embrion i ra|aju se `ivi mladunci; –ovoviviparnost (kod nekih gmizavaca i ajkula), koja predstavqa kombinaciju oviparnosti i viviparnosti; posle oplo|ewa jaja u kojima se razvijaju embrioni nalaze se u majci, ali oni se hrane `umancetom jajne }elije. Po zavr{enom embrionalnom razvi}u majka ra|a `ive mladunce.
Oplo|ewe se odvija u tri osnovna stupwa. Prvi stupaw je prepoznavawe i kontakt jajne }elije i spermatozoida. Gameti iste vrste se „prepoznaju“ i kontaktiraju pomo}u specifi~nih proteinskih receptora. Spermatozoidi sisara odmah po ubacivawu u `enske polne organe nemaju sposobnost oplo|ewa, ve} je zadobijaju postepeno, borave}i u wima. Taj proces naziva se kapacitacija. Tokom wega se produktima lu~ewa jajnika i uterusa (enzimima) na membrani spermatozoida „otkrivaju“ mesta za prepoznavawe i vezivawe za jajnu }eliju.
vitelinski omota~ fertilizacioni omota~ kortikularna granula
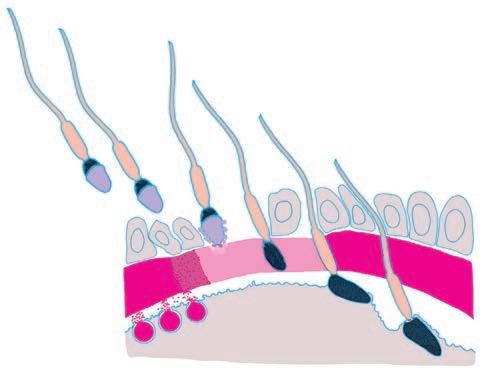
spermatozoidi
folikularne }elije
Stupwevi oplo|ewa: (1) prepoznavawe i specifi~an kontakt gameta izaziva (2) akrozomalnu reakciju; spermatozoid prodire (3) do membrane jajne }elije i (4) ulazi; istovremeno, kortikalnom reakcijom (5) formira se fertilizacioni omota~ jajna }elija
Kapacitacijom spermatozoid sti~e i sposobnost kretawa kroz sloj folikularnih }elija koje okru`uju oocitu. Potrebno mu je 2’15’’ minuta da u potpunosti pro|e izme|u wih i vitelinskog omota~a.
U prirodi se izuzetno retko de{ava da izme|u gameta dve razli~ite vrste `ivotiwa do|e do oplo|ewa, ali to nije nemogu}e. Poznat je slu~aj mule koja nastaje kao potomak iz ukr{tawa kowa i magarca, ali je sama neplodna.
Drugi stupaw je kontrolisani ulazak spermatozoida u jajnu }eliju. U ciqu odr`avawa diploidnosti samo jedan spermatozoid sme da izvr{i oplo|ewe, zbog ~ega ve}ina vrsta jajnih }elija i dozvoqava ulazak jednog spermatozoida.
Iako je ulazak jednog spermatozoida (monospermija) naj~e{}i u oplo|ewu, ima i druga~ijih primera. Kod ptica u jajnu }eliju uvek ulazi ve}i broj spermatozoida (polispermija), ali samo jedan je oplodi.
Da bi spermatozoid fizi~ki dospeo do membrane jajne }elije, mora da razlo`i vitelinski omota~. On se razla`e tako {to membrana akrozoma prska i osloba|aju se enzimi, tj. dolazi do akrozomalne reakcije. Kada se na taj na~in „probije“ do membrane, spermatozoid ulazi u jajnu }eliju. Ka`e se da spermatozoid „ulazi“, a zapravo ulaze samo nukleus i centriole (mitohondrije i bi~ ostaju izvan jajne }elije). Ulazak nukleusa i centriola omogu}avaju duga~ki aktinski filamenti koji se formiraju iznad nukleusa, prodiru u citoplazmu jajne }elije i „povuku“ ih za sobom.
primarna oocita
metafaza I
Jajna }elije se s ulaskom spermatozoida „aktivira“. Pokre}u se kortikalne granule ka wenoj membrani. U kortikalnoj reakciji koja se {iri kao talas oko mesta ulaska spermatozoida one izbacuju svoj sadr`aj u postoje}i vitelinski omota~. U granulama se nalazi jedna vrsta polisaharida koji privla~i vodu i, bubre}i, stvara debeo fertilizacioni omota~. Granule sadr`e i enzime koji dodatno ~ine omota~ nepropustqivim. U po~etku on {titi jajnu }eliju od eventualnog ulaska drugih spermatozoida, a kasnije {titi i rani embrion od mehani~kih o{te}ewa. Me|u vrstama postoji razlika u du`ini razvi}a unutar tog omota~a. Kod `abe, na primer, fertilizacioni omota~ postoji i posle gastrulacije, dok kod qudi ve} blastocist ostaje bez wega.
Spermatozoid ne ulazi u jajnu }eliju na bilo kom mestu, ve} u okviru ta~no odre|enog regiona membrane. To je jo{ jedan od na~ina odre|ivawa polarnosti i simetrije budu}eg embriona, jer mesto ulaska obi~no odre|uje prvu deobnu ravan (zami{qenu ravan koja prolazi kroz jajnu }eliju na mestu gde se zigot prvi put podeli i dâ dve blastomere) ili simetriju budu}eg embriona.
Tre}i stupaw je spajawe haploidnih nukleusa (genetskog materijala spermatozoida i jajne }elije. U vreme kada spermatozoid ulazi u jajnu }eliju ona kod ve}ine vrsta nije zavr{ila mejoti~ku deobu. Po wegovom ulasku mejoza se zavr{ava i haploidni nukleusi se u centru jajne }elije spajaju.
metafaza II
mejoti~ke deobe zavr{ene
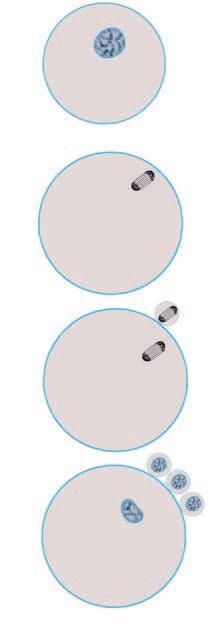
vaqkasti crvi, sun|eri
ve}ina insekata, morska zvezda
polarno telo
vodozemci, sisari, ribe
polarna tela
morski je`, morske sase
Stepen zrelosti jajne }elije u vreme oplo|ewa kod razli~itih vrsta `ivotiwa
Iako kod sisara, vodozemaca i riba spermatozoid ulazi u jajnu }eliju koja je u drugoj mejoti~koj deobi, postoje i druga~iji primeri: kod sun|era mejoza nije ni zapo~ela, kod nekih crva i morske zvezde zavr{ena je samo mejoza I, a kod morskog je`a mejoza je potpuno zavr{ena i formiran je haploidni nukleus.
Posle spajawa nukleusa zigot sledi maj~inska uputstva i otpo~iwe rano razvi}e. Ono obuhvata brazdawe i gastrulaciju, tokom kojih zigot stvara vi{e}elijski i troslojni embrion.
Susret i spajawe gameta uobi~ajeni su u polnom sistemu `ene. Nepravilno stvoreni gameti ili nemogu}nost da do wihovog susreta do|e ima kao posledicu nemogu}nost za~e}a, tj. neplodnost. Na~in da se ta prirodno nepovoqna situacija prevazi|e jeste ve{ta~ko oplo|ewe
U zavisnosti od nivoa na kome je nastao problem neplodnosti primewuju se razli~ite tehnike asistirane reprodukcije. Ako je problem u nemogu}nosti stvarawa gameta – koriste se davaoci (donori). Ukoliko je problem u nemogu}nosti spermatozoida da se kre}u –sperma se unosi u jajovod. A kada je u pitawu neprohodnost jajovoda – jajne }elije se uzimaju iz jajnika, gaje i oplode u laboratoriji, a zatim vra}aju u telo majke. Potencijalni roditeqi iz banke gameta „katalo{ki“ biraju spermatozoide i jajne }elije po osobinama onih koji su ih deponovali. Oplo|ene jajne }elije ne ~uvaju se takve, ve} se pu{ta da zapo~ne brazdawe, pa se embrioni s odre|enim brojem }elija zamrzavaju.
Prvo poznato ve{ta~ko oplo|ewe kod qudi izvedeno je u Velikoj Britaniji i 25. jula 1978. godine ro|ena je zdrava `enska beba Luiz Braun. U dana{we vreme, vi{e od 250 000 beba godi{we na ovaj na~in do|e na svet.
Iako je za roditeqe koji dobiju potomka ovaj metod potpuno opravdan, ipak postoje moralne i pravne dileme asistirane reprodukcije. One su do{le do izra`aja u medicinskoj i pravnoj praksi tokom vi{edecenijske primene i u budu}nosti }e morati da budu zakonski regulisane. Neke od tih dilema mogu se okarakterisati kao zloupotreba – kada lekari koriste sopstvenu spermu, a ne donorsku, i tako obmawuju roditeqe; neke kao gre{ka –kada se desi da se tokom vra}awa embriona u telo majke embrioni zamene; ali ima i zabriwavaju}ih – kada par pre ven~awa otkrije da su wihove majke oplo|ene istim davaocem sperme ili kada davalac u kasnijim godinama oboli od neke genetske bolesti, a ve} „ima“ osamnaestoro dece za~ete wegovom spermom. Na`alost, ima i potpuno besmislenih situacija – da jedan potomak roditeqa poginulih u avionskoj nesre}i po testamentu „deli“ nasledstvo sa zamrznutim embrionom koji su oni deponovali, ili da su zamrznuti embrioni predmet deobe tokom brakorazvodne parnice.
Pitawa i zadaci
1. [ta je oplo|ewe?
2. Gde se oplo|ewe odvija?
3. Koja su tri osnovna stupwa oplo|ewa? Opi{ite ih ukratko.
4. Na koji na~in mladunci `ivotiwa sa unutra{wim oplo|ewem dolaze na svet?
RAZMISLITE!
1. Da li se i tokom ve{ta~kog oplo|ewa razlikuju tri osnovna stupwa? Prodiskutujte o tome.
Posle oplo|ewa zigot sledi maj~inska uputstva koja ga vode u i kroz naredne stupweve razvi}a. Razvi}e je vremenski kontinuiran sled stupweva ozna~enih kao brazdawe, gastrulacija i organogeneza. Stupwevi su me|usobno uslovqeni: da bi jedan otpo~eo ili se nastavio na drugi, prethodni mora uspe{no da se okon~a.
Stupweve razvi}a mo`emo zamisliti kao nizove domina koji otpo~iwu „ru{ewe“ prvom dominom – oplo|ewem – i nastavqaju ostale stupweve razvi}a koji se nadovezuju na prethodne. Na taj na~in se, tako|e, mo`e zamisliti da slo`enija razvi}a imaju slo`enije i granatije „slike od poru{enih domina“. Zapravo, svaka vrsta ima sopstvene „figure“. Budu}i da od pravilnog razvi}a zavisi sudbina ~itave jedne vrste, va`no je da stupwevi budu kontinuirani i nepovratni.
Kontrola pravilnog odvijawa razvi}a u po~etku se zasniva na informacijama koje nosi jajna }elija, a kasnije same blastomere eksprimiraju gene i sinteti{u specifi~ne produkte. Specifi~nost u eksprimirawu gena ostvaruje se me|usobnim interakcijama blastomera, odnosno indukcijom (primarnom, sekundarnom, tercijarnom itd.).
@ivotiwe su slo`ene gra|e. To su vi{e}elijski organizmi koji poseduju milijarde }elija organizovanih u tkiva, organe i sisteme organa. Da bi jedno}elijski zigot postao vi{e}elijski organizam, on se brazda, tj. deli uzastopno mitoti~kim deobama daju}i dva, ~etiri, osam, {esnaest ... do nekoliko stotina i hiqada }elija blastomera. Broj uzastopnih deoba nije beskona~an. On je zapisan u jajnoj }eliji i druga~iji je za svaku vrstu. Kao rezultat brazdawa nastaje embrionalni stupaw blastula. Po{to deobe teku jedna za drugom, blastomere nemaju vremena da rastu, tako da ni embrion tokom brazdawa ne raste. Zato su pojedina~ne blastomere znatno mawe od oplo|ene jajne }elije, a nastala blastula je iste veli~ine kao zigot.
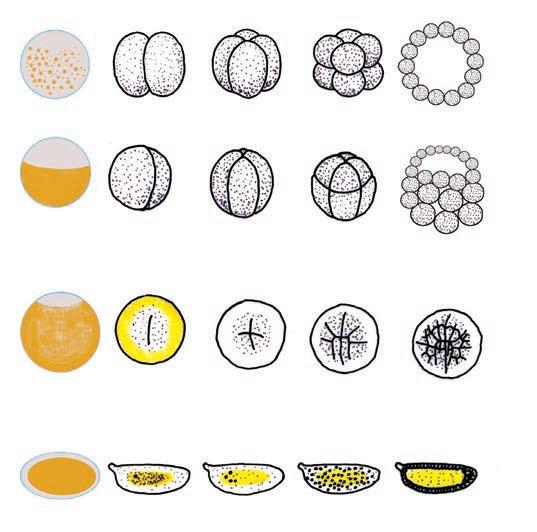
Brazdawe zigota zavisi, pre svega, od koli~ine i rasporeda `umanceta u jajnoj }eliji, odnosno od vrste jajne }elije. @umance ko~i brazdawe jer je gusto i usporava deobu citoplazme. Jajne }elije koje imaju malu ili sredwu koli~inu `umanceta (izolecitne, mezolecitne) brazdaju citoplazmu u potpunosti, odnosno holoblasti~no, a jajne }elije bogate `umancetom (telolecitne) brazdaju je samo u jednom delu, nepotpuno, odnosno meroblasti~no. Kod ptica, se brazda samo animalni, vr{ni deo citoplazme u vidu ostrvca, dok preostali deo }elije sa `umancetom ostaje nepodeqen (zato embrion pileta li~i na crnu ta~kicu koja „pliva“ po ogromnom `umancetu). Kod insekata, `umance je u centru jajne }elije, pa se brazda samo citoplazma na povr{ini.
Brazdawe je samo u po~etku ravnomerno, odnosno sve nastale blastomere su jednake. Kasnije, brazdawe postaje neravnomerno, daju}i blastomere nejednake veli~ine. Od dve nastale blastomere jedna se deli br`e, a druga sporije.
Ravnomernim brazdawem blastomere se raspore|uju u jednom sloju – blastodermu, koji okru`uje „{upqu“ unutra{wost – blastocel. Kod morskog je`a blastocel je centralna {upqina, dok je kod `abe postavqen ekscentri~no, pomeren ka jednom polu blastule.
Iako se blastocela opisuje kao {upqa unutra{wost blastule, to nije prazan prostor, ve} se isti~e da nije ispuwen }elijama. Blastocel je ispuwen sekretnim produktima blastomera: kod morskog je`a, na primer, to je `elatinozna masa.
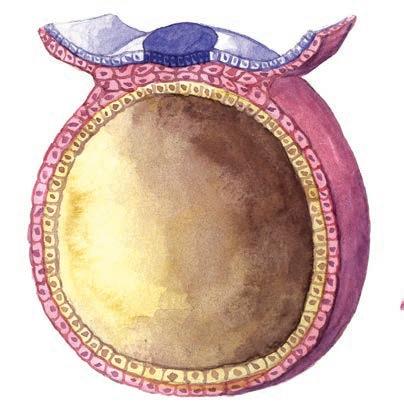
Neravnomernim brazdawem (ptice, sisari) blastomere nastaju samo na jednom polu – animalnom, gde se stvara vi{eslojni blastoderm – blastodisk. Kod sisara se blastula naziva blastocistom. Izgra|ena je od jednog sloja }elija na povr{ini – trofoblasta, centralne {upqine – blastocela, i unutra{we mase }elija prika~ene za trofoblast na jednom kraju blastocela. Samo od te unutra{we mase }elija formira se embrion.
Poseban na~in brazdawa zapa`a se kod insekata. U po~etku, brazdaju se samo nukleusi do ta~no odre|enog broja, a zatim se iz centra preme{taju u perifernu citoplazmu i tek tada se stvaraju posebne blastomere. Na taj na~in povr{inske blastomere okru`uju centralno postavqeno `umance. Interesantno je da svaki nukleus „zna“ svoju poziciju, tako da uni{tavawem dela citoplazme nema preme{tawa nukleusa i remeti se razvi}e.
Kada embrion dostigne odre|eni broj }elija i stvori blastulu, blastomere se pokre}u i organizuju u tri tkiva (sloja). Formira se jedan spoqa{wi sloj – ektoderm, jedan unutra{wi –endoderm, i sredi{wi, umetnuti, tre}i sloj – mezoderm. Kao rezultat gastrulacije nastaje embrionalni stupaw – gastrula. U unutra{wosti gastrule endoderm formira {upqinu – gastrocel, koja ima otvor – blastopor – za komunikaciju sa spoqa{wom sredinom.
U zavisnosti od toga da li }e blastopor u kasnijem razvi}u biti usneni ili analni otvor, me|u `ivotiwama se razlikuju dve velike grupe: protostome (ve}ina beski~mewaka; od blastopora nastaju usta) i deuterostome (hordati; od blastopora nastaje analni otvor, a usneni se formira na suprotnom kraju).
Pokreti blastomera u gastrulaciji mogu se razvrstati na slede}i na~in:
– invaginacija – uvla~ewe sloja blastomera u unutra{wost (tako nastaje endoderm morskog je`a),
– involucija – preme{tawe sloja blastomera u unutra{wost raspore|ivawem uz spoqa{wi sloj (tako nastaje mezoderm `abe),
– ingresija – preme{tawe pojedina~nih blastomera, wihovo „upadawe“ u blastocel (tako nastaje mezoderm morskog je`a),
– delaminacija – raslojavawe (tako nastaje endoderm ptica i sisara), i – epibolija – kada deqewem }elija jedan sloj raste preko drugog, „obrasta“ ga (tako nastaje ektoderm `abe).
Gastrula se nikada ne stvara samo jednom vrstom pokreta, ve} kombinovawem dva ili tri (npr. kod morskog je`a ingresijom i invaginacijom). Stvarawem gastrule prvi put se uo~avaju morfolo{ke promene koje }e se nastaviti tokom kasnijeg razvi}a. Dok je blastula loptasta ili ovalna kod skoro svih vrsta, gastrula se izdu`uje u jednom pravcu, ~ime se uspostavqa glaveni i repni region, kao i bilateralna simetrija.
Gastrulacioni pokreti ostvaruju se aktivnim kretawem blastomera. One napu{taju svoje mesto u blastodermu i, koriste}i aktinski citoskelet, pokre}u se u odre|enom pravcu. Kako }elije „znaju“ taj pravac? Tako {to prate odre|ene hemijske signale, a putevi kojima idu sa~iweni su od specifi~nog van}elijskog matriksa. Oslawaju}i se na komponente matriksa, }elije napreduju u odre|enom smeru mawom ili ve}om brzinom.
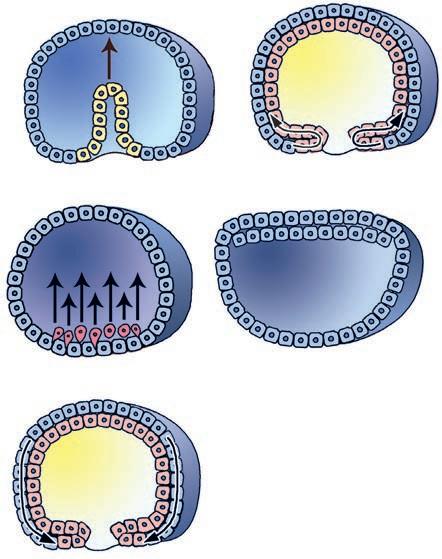
blastomera tokom gastrulacije
Gastrulacioni pokreti ne odvijaju se na celoj povr{ini blastule, ve} u odre|enim regionima koji su specifi~ni za vrstu. Mesto migracija }elija se mo`e uo~iti jer se formiraju privremene strukture. Kod `abe, na primer, to su dorzalna i ventralna usna blastopora, a kod ptica i sisara – primitivna traka.
Od tri gastrulina sloja – ektoderma, endoderma i mezoderma – procesom organogeneze nastaju sva tkiva i organi u organizmu. Embrion pokretawem i specifi~nom organizacijom }elija mewa oblik, veli~inu i stvara za~etke organa, ekstremiteta, glave, ostvaruju}i op{ti plan gra|e tela karakteristi~an za vrstu.
Op{ti plan gra|e tela `ivotiwa podrazumeva bilateralnu simetriju i stvarawe osovinskih organa. Bilateralna simetrija zna~i da se telo mo`e podeliti zami{qenom crtom na polovine koje se poklapaju, tj. odnose kao predmet i lik u ogledalu. Osovinski organi ki~mewaka kojima i mi pripadamo u stvari su tri cevi u centru tela, upravo na toj zami{qenoj liniji: crevna cev, notohorda i nervna cev. Pozicija osovinskih organa odre|uje le|no-trbu{nu organizaciju organizma – naime, crevna cev }e biti na trbu{noj, a nervna cev na le|noj strani.
Osovinski organi uobli~avaju se istovremeno s gastrulacionim pokretima }elija.
Crevna cev nastaje na samom po~etku gastrulacije od }elija endoderma (kod morskog je`a i `abe), ili delaminacijom endoderma (kod ptica i sisara).
Notohorda je struktura koja se sre}e samo kod hordata. Nastaje iznad crevne cevi specijalizacijom dela mezoderma. Tokom ulaska u unutra{wost gastrule }elije notohorde stvaraju stubi} tkiva koje se intenzivno izdu`uje, ~ime izdu`uje i embrion. Kod ki~mewaka, notohordu }e zameniti ki~ma.
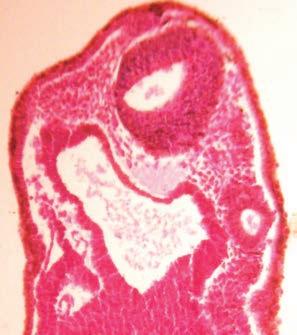
nervna cev notohorda crevna cev
Osovinski organ – presek embriona `abe u nivou osovinskih organa posmatran na svetlosnom mikroskopu
ektoderm
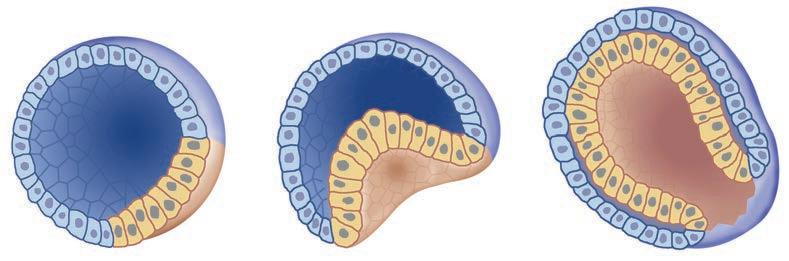
endoderm endoderm
Nastanak crevne cevi invaginacijom endoderma
crevna cev
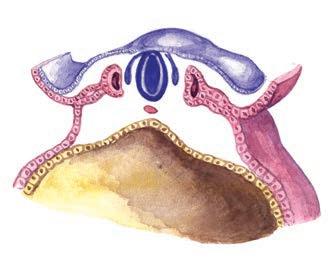
Nervna cev nastaje procesom neurulacije od ektoderma koji je postavqen iznad notohorde. Notohorda indukuje (izaziva) proces neurulacije jer, dodiruju}i ektoderm, izaziva u wemu slede}e promene: wegov centralni deo zaravwuje, nervna plo~a zadebqava i savija se u nervni oluk, zatim se odvaja od ostatka ektoderma i postaje nervna cev. Od we }e se formirati mozak i ki~mena mo`dina. Posledwi deo nervne cevi (budu}i glaveni region) pro{iruje se prvo u tri, a zatim u pet mehura, koji se diferenciraju u pet mo`danih regiona.
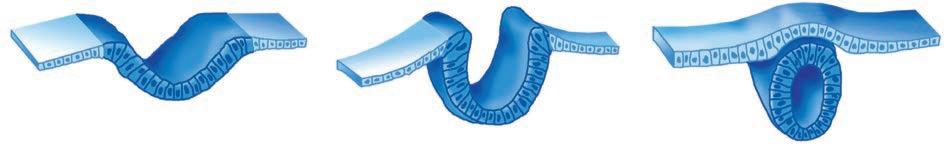
nervna plo~a nervni oluk nervna cev
Neurulacija
Tokom neurulacije, neposredno pred zatvarawe nervnog oluka u cev, sa wegovih rubova izdvoji}e se mala grupa }elija – }elije nervne kreste. Wihova po~etna pozicija je izme|u epiderma ko`e i nervne cevi, da bi kasnije migrirale levo i desno od we. Diferencirawe }elija nervne
kreste zavisi od indukcije, odnosno od wihove pozicije. Na predwem delu embriona te }elije pridru`i}e se mo`danim regionima, a zadebqawem formiraju plakode iz kojih }e se razviti ~ulni organi glave (sluha, mirisa). U drugim regionima embriona }elije nervne kreste u~estvova}e u formirawu ganglija, prate}ih }elija nervnih vlakana i sr`i nadbubre`ne `lezde. Sa uobli~avawem osovinskih organa izdvajaju se (diferenciraju) za~eci mi{i}a, ekstremiteta i svih unutra{wih organa. Za~eci mi{i}a – somiti – nastaju segmentacijom mezodermalnih traka levo i desno od osovinskih organa. Ostali organi uobli~avaju se savijawem, razdvajawem i/ili povezivawem }elija. U procesu uobli~avawa {ake zna~ajna je i }elijska smrt. Naime, {aka se prvo stvori kao celovita, plo~asta izbo~ina na ekstremitetu, a zatim se, umirawem velikih grupa }elija, iz we „kroje“ prsti. Svi ti procesi dovode do programirane promene veli~ine, oblika i proporcija embriona – morfogeneze
Organogeneza ukqu~uje ne samo pokrete }elija ve} i promenu wihovog oblika, deqewe ili smrt, diferencijaciju u odre|eni tip i povezivawe sa susednim }elijama. Tim procesima se stvaraju tkiva – i to je histogeneza. Tako nastaju ~etiri osnovna tipa tkiva: nervno, mi{i}no, vezivno i epitelno
Kako }elije „znaju“ {ta treba da postanu? Informacioni molekuli razvi}a zapravo su informacione RNK koje nose zapis za sintezu odre|enih proteina. Sintezom tih proteina }elija postaje odre|en }elijski tip (npr., samo }elije od kojih }e postati crvena krvna zrnca sintetisa}e hemoglobin). To je proces diferencijacije.
Kada se donosi odluka da li }e }elija biti nervna, mi{i}na ili bubre`na? Kod ve}ine `ivotiwskih vrsta ta odluka se donosi ve} u jajnoj }eliji. Razli~ite informacione RNK (iRNK) raspore|uju se neravnomerno uz membranu i u citoplazmi jajne }elije. Tokom brazdawa, blastomere dobijaju druga~ije vrste iRNK i razlika izme|u wih se pove}ava svakom novom deobom. Tokom gastrulacije te razli~ite blastomere putova}e zajedno i grupisa}e se u tri razli~ita sloja. Jedan od na~ina pra}ewa „sudbine“ pojedina~nih blastomera, odnosno delova citoplazme jajne }elije jeste izrada sudbinskih mapa.
Sudbina }elija tri sloja gastrule tokom organogeneze i uo~avawe organa koje oni stvaraju mo`e se pratiti ubrizgavawem tri razli~ite, ne{kodqive (vitalne) boje. Na taj na~in se a) b) blastula gastrula v) jajna }elija ektoderm mezoderm endoderm ektoderm „budu}i” mezoderm endoderm blastomere
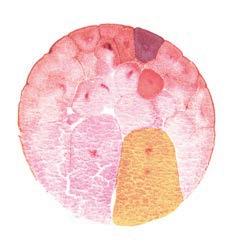
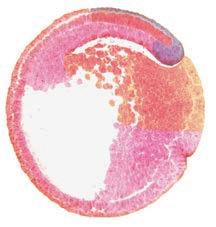
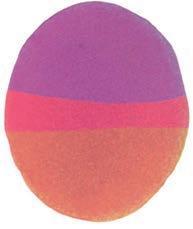
Sudbinske mape iscrtavaju se posmatrawem obojenih blastomera (a) u gastrulaciji (b) tako da se na nivou jajne }elije mo`e znati koji }e weni regioni davati tri tipa tkiva embriona.
embrion
endoderm mezoderm
ektoderm
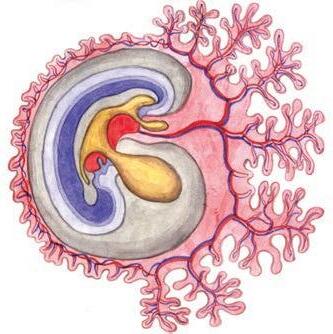
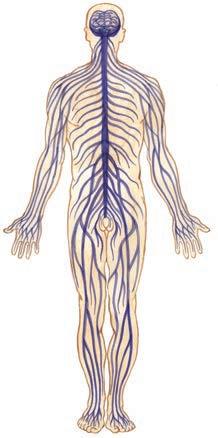
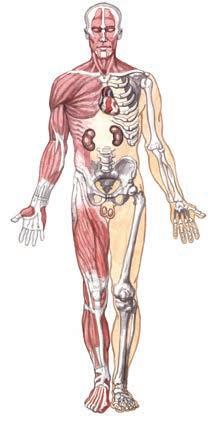
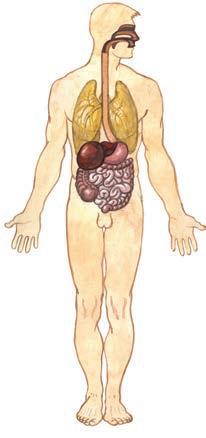
pokreti, deoba i udru`ivawe }elija iscrtavaju na sudbinskimmapama, pa se govori o pore klu nastalih organa. Usvojene boje slo jeva su: za ektoderm –plava, za endoderm – `uta i za mezoderm – crvena. Tako se mo`e re}i da }e iz ektoderma na stati ko`a, sve ko`ne tvorevine, nervni sistem i ~ula, iz endoderma crevni epitel i `le zde koje su s wim u vezi, a iz mezoderma – ve zivo, unutra{wi skelet, mi{i}i i organi za izlu~ivawe.
S obzirom na razliku me|u blastomerama, va`no pitawe u biologiji razvi}a jeste da li se ona uspostavqa jo{ na nivou jajne }elije ili postepeno tokom brazdawa. Drugim re~ima, da li je mogu}e tokom brazdawa razdvojiti blastomere tako da od svake nastane ceo organizam, ili su one toliko razli~ite da posle razdvajawa propadaju?
Me|u `ivotiwama postoje velike razlike u potentnosti jajnih }elija, odnosno determinisanosti razvi}a. Jajna }elija sisara je totipotentna na stupwevima od 2, 4 i 8 blastomera, {to zna~i da je wihovim razdvajawem mogu}e dobiti osam potpuno razvijenih organizama (jedino im je veli~ina tela znatno smawena). Kod sisara, dakle, razli~itost blastomera zapo~iwe tek posle osmo}elijskog stupwa. Totipotentnost ranih blastomera zapa`a se i kod morskog je`a i `abe, ali ne i kod ptica i insekata. Potentnost blastomera odre|uje i tipove razvi}a. U determinisanom razvi}u (insekti) telo embriona se uobli~ava tako {to deobama svaka blastomera iz oplo|ene jajne }elije dobija determinante (odrednice) za poziciju u organima. U kontrolisanom razvi}u (sisari) telo embriona u po~etku nastaje interakcijom blastomera, a kasnije tkivâ procesima indukcije
Diferencirawe embrionalnih tkiva u tri sloja tokom gastrulacije samo je preduslov za wihovo daqe kombinovawe u procesima organogeneze. ]elije ova tri sloje ne samo da se postavqaju fizi~ki blizu ve} su u aktivnoj interakciji jedne s drugima. Ta interakcija ogleda se u indukciji uobli~avawa i stvarawa organa, a mo`e biti jednosmerna, dvosmerna ili vi{esmerna.
Jenosmerna ili primarna indukcija ve} je pomiwana kada je bilo re~i o ranom embrionalnom razvi}u pri uobli~avawu nervne cevi. ]elije horde se postavqaju ispod ektodermalnog epitela na dorzalnoj strani embriona i indukuju u wemu niz morfolo{kih promena koje dovode do stvarawa nervne cevi.
Nervna cev se na predwem delu pro{iruje u tri, a zatim u pet mehura, odnosno diferencira u trodelni, pa u petodelni mozak. Sredwi od tih mehura pribli`ava se epitelu ko`e (ektodermalnom epitelu) i indukuje stvarawe o~nog pehara, odnosno jabu~ice i o~nog so~iva. Oko ki~mewaka se, dakle, formira dvosmernom, sekundarnom indukcijom. Dvosmernost se ogleda u tome {to ektodermalni epitel indukuje neuroektoderm da formira o~ni pehar, a zauzvrat on indukuje ektodermalni epitel da formira o~no so~ivo.
Daqe uobli~avawe svih ostalih organa ukqu~uje vi{esmernu, tercijarnu indukciju razli~itih tkiva, na primer ektoderma i mezoderma (ko`a) ili endoderma i mezoderma (pankreas). Organi su slo`ene gra|e: uz epitelne }elije nalaze se i prate}a vezivna tkiva. Kada je u pitawu ko`a, epitel je ektodermalnog, a potko`no vezivo mezodermalnog porekla. Osim epitela i veziva, u formirawu ko`e u~estvuju nervi i krvni sudovi, pigmentne }elije itd. Zato je vi{esmernost u me|udelovawu razli~itih }elija i tkiva od izuzetnog zna~aja u razvi}u organizma.
Kako se izazivaju razvojne, morfolo{ke promene u okolnim }elijama? Mehanizmi indukcije ukqu~uju dodirivawe i lu~ewe signalnih molekula koji mewaju transkripciju gena susednih }elija. ]elije koje imaju sposobnost indukcije nazivaju se organizatori, a signalni molekuli – morfogeni. Do sada je iz blastomera izolovano nekoliko morfogena. Oni su razli~ito koncentrisani u pojedinim blastomerama u ranom razvi}u. Morfogen razli~ito deluje na okolne }elije – u zavisnosti koliko su one udaqene od organizatorske }elije koja ga lu~i.
Totipotentnost blastomera sisara uzrok je ra|awa blizanaca koji se ozna~avaju kao jednojaj~ani. Naime, tokom trudno}e iz za sada nedovoqno poznatih razloga mo`e do}i do fizi~kog razdvajawa blastomera (naj~e{}e dve), koje se razvijaju u posebne organizme. Tako nastaju blizanci identi~nog pola i izgleda.
Za razliku od wih, dvojaj~ani blizanci nastaju tako {to se produkuju dve jajne }elije i obe bivaju oplo|ene. Nastali organizmi su veoma razli~iti, a mogu biti ~ak i razli~itog pola. Trojke, ~etvorke i petorke nastaju na sli~an na~in, ali su u prirodi relativno retke. Danas se ~e{}e sre}u kod parova koji koriste ve{ta~ko oplo|ewe jer se u uterus unosi vi{e embriona da bi se pove}ala {ansa implantacije.
Blizana~ke ili vi{estruke trudno}e komercijalno se koriste u poqoprivredi, na primer za pove}awe sto~nog fonda.
Ve} smo pomenuli da se totipotentnost blastomera kod qudi koristi za kontrolisawe kvaliteta zigota pri ve{ta~kom oplo|ewu. Razmi{qa se i o tome da se posle oplo|ewa
jedna od blastomera sa~uva zamrznuta i kasnije upotrebi za ve{ta~ko gajewe tkiva i organa koji bi se koristili u transplantaciji. Budu}i da bi takav organ bio identi~an organu osobe ~ija je blastomera sa~uvana, ne bi dolazilo do odbacivawa organa kao u slu~aju davaoca. Ovaj postupak se razmatra kao alternativa klonirawu jer bi na taj na~in svako od nas imao „sa~uvane“ blastomere. Me|utim, kao i klonirawe, on otvara mnoge eti~ke, pravne i ekonomske dileme.
Pitawa i zadaci
1. [ta je brazdawe?
2. [ta je blastoderm, a {ta blastocel?
3. Kako se razvrstavaju gastrulacioni pokreti?
4. Opi{ite gastrulu.
5. Skicirajte polo`aj osovinskih organa ki~mewaka u embrionu.
6. Kojim procesom nastaje nervna cev?
7. Objasnite organogenezu, histogenezu i diferencijaciju u embrionu.
8. [ta su sudbinske mape i kako se one dobijaju?
9. Koja je razlika izme|u determinisanog i kontrolisanog razvi}a?
10. [ta je indukcija?
11. Navedite primere indukcije u organogenezi.
1.Da li se kod jednojaj~anih blizanaca svi segmenti razvi}a odvijaju na isti na~in?
2.Na koji bi na~in, u ve{ta~kim uslovima, iz sa~uvane blastomere moglo da se formira oko?
3.Da ste u prilici da odlu~ujete, da li biste radije sa~uvali svoju blastomeru ili se klonirali?
Embrioni ki~mewaka od po~etka gastrulacije i daqe tokom razvi}a pona{aju se kao pravi organizmi: imaju potrebu za hranom, razmenom gasova i za{titom. Zato su se razvile razli~ite evolutivne strategije wihovog pre`ivqavawa, pogotovu kod kopnenih `ivotiwa, gde je suva sredina poseban izazov. Ve}ina embriona razvija se na ra~un hranqivog materijala iz jajne }elije. Po{to razvi}em nastaje sve ve}i broj }elija, bilo je potrebno pove}ati povr{inu razlagawa i apsorbovawa hrane radi dostupnosti svakoj }eliji. Zato se tokom evolucije razvila ekstraembrionalna tvorevina – `umancetna kesica. ]elije gastrule obrastale su `umance i ujedno ga razlagale. Sa rastom embriona `umance se tro{i i smawuje kesicu sve dok ne postane deo crevne cevi. @umancetnu kesicu razvijaju sve vrste ki~mewaka, ukqu~uju}i i ~oveka. Me|utim, budu}i da embrion ~oveka nastaje iz jajne }elije koja prakti~no i nema `umance, ova ekstraembrionalna tvorevina nije u funkciji ishrane. U woj se formiraju stem (izvorne) }elije gameta i }elije krvi. Weno stvarawe govori i o tome da evolutivno poti~emo od vrstâ koje je poseduju.
Tokom prilago|avawa `ivotu na kopnu gmizavci, ptice i sisari su razvili i embrionalne omota~e. Da bi uspeli da pre`ive suvu kopnenu sredinu, wihovi embrioni stvorili su oko sebe amnion – omota~ ispuwen te~no{}u u kojoj se razvijaju. S obzirom na va`nost pojave amniona, grupe `ivotiwa koje ga poseduju nazvane su amnioti, za razliku od grupa samo sa `umancetnom kesicom, koje se nazivaju anamnioti
Osim amniona, amnioti poseduju i horion i alantois. Amnion i horion razli~ito nastaju kod ptica i gmizavaca u odnosu na sisare. Kod pile}eg embriona, na primer, ta dva omota~a stvaraju se istovremenim izdizawem ovoja iznad embriona s obe strane (glavene i repne). Kada se spoje, amnion ostaje oko embriona, a horion biva potisnut uz unutra{wu stranu quske, gde u~estvuje u disawu embriona (quska jajeta je propustqiva za kiseonik i ugqen-dioksid).
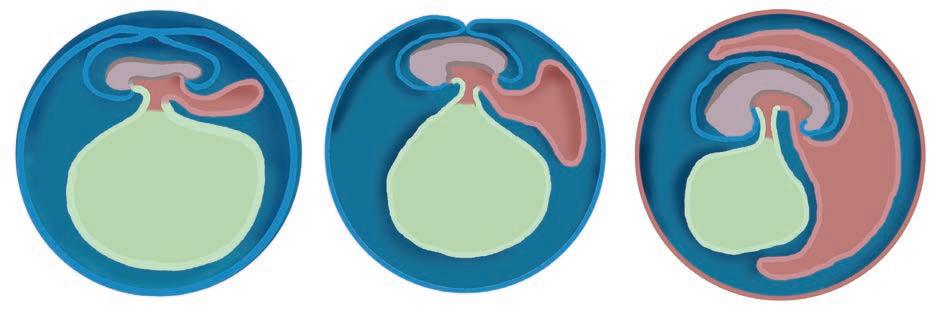
ekstraembrionalnih struktura kod ptica
Kod sisara, amnion nastaje delaminacijom, odvajawem od embriona, dok horion nastaje od sloja }elija na periferiji blastocista ozna~enog kao trofoblast. Po{to jaje sisara nema qusku, horion }e se priqubiti uza zid materice. Enzimima koje lu~i on razara tkivo materice i poma`e embrionu da je naseli – implantira se. Kasnije, formira}e horionske resice u placenti i u~estvova}e u razmeni materijala izme|u krvi majke i krvi embriona.
Amnionska te~nost je va`na za embrion jer ga {titi od mehani~kih o{te}ewa i isu{ivawa, omogu}uje odre|enu koncentraciju jona da mu se ko`a ne bi sme`urala usled dugotrajnog izlagawa te~nosti, a tako|e podse}a da je `ivot nastao u okeanima.
`umancetna kesa
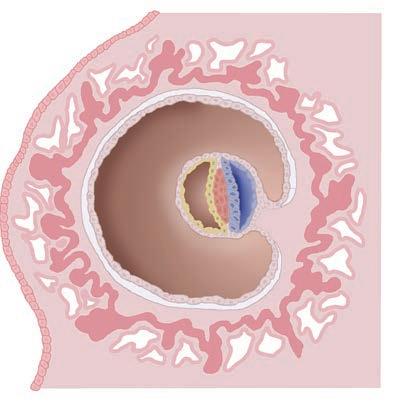
amnion horion
Nastanak ekstraembrionalnih struktura kod qudi oblast budu}ih horionskih resica
Alantois je ekstraembrionalna tvorevina koja se nalazi samo kod amniota. Nastaje kao izra{taj crevne cevi. Kod pile}eg embriona alantois se {iri kroz ekstraembrionalni celom, ispuwavaju}i ga u potpunosti. Na taj na~in se fizi~ki pribli`ava horionu i ujediwuje se s wim u horioalantois, omogu}uju}i kasnom embrionu pileta da intenzivnije di{e. Pored toga, alantois slu`i i kao depo urina.
Kada je re~ o na{oj vrsti, alantois u placenti svojim krvotokom doprinosi fetalno-placentalnoj cirkulaciji.
Placentalni sisari prilagodili su razvi}e embriona tako {to su evolutivno po stigli najprisniju vezu horiona s telom majke u kojoj se razvija. Placenta mo`e biti horiovitelusna ili horio alantoisna tvore vina. Horion stvara resice koje prodiru u tkivo uterusa majke, a `umancetna kesa ili alantois – u zavisnosti od tipa placente – formira krvne sudove koji kroz pup~anu vrpcu iz embriona dopiru do svake horionske resice i prave kapilarnu mre`u. Na taj na~in embrioni sisara koji se razvijaju iz jajne }elije siroma{ne `umancetom i koji znatno rastu tokom embrionalnog razvi}a mogu da se hrane u dovoqnoj meri. Placenta, me|utim, predstavqa mnogo vi{e od organa za ishranu embriona. Ona fizi~ki odr`ava embrion prika~en za zid uterusa i lu~i veliki broj hormona koji omogu}uju razvoj embriona, zapo~iwu poro|aj i izazivaju stvarawe mleka za ishranu mladunca.
amnion
placenta
pup~ana vrpca
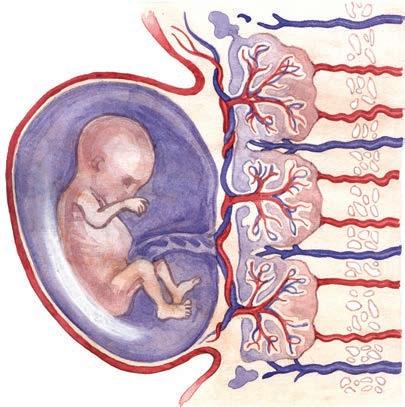
uterus horionske resice
Horionske resice (horion i alantois) u oblasti placente
Iako je osnovna gra|a placente istovetna kod svih placentalnih sisara, placente se mogu razlikovati po spoqa{woj morfologiji i prisnosti kontakta s tkivom uterusa. Prema obliku i povr{ini kojom su povezane s uterusom, placente mogu biti: difuzne (povezane ~itavom povr{inom, kao kod kowa i sviwa), kotiledone (povezane vi{estrukim, diskretnim povr{inama u obliku kotiledona, kao kod krave), zonalne (povezane pojasno, kao kod pasa i ma~aka) ili diskoidalne (povezane diskoidalno, kao kod ~oveka i pacova).
Krv majke i krv embriona se ne me{aju. Me|usobnu razmenu gasova i hranqivih materija obavqaju kroz krvne sudove i }elije horiona, odnosno }elije uterusa. Najprisniju i najdirektniju vezu ostvaruju embrioni primata i glodara. To je veza u kojoj krv majke iz uterusnih krvnih sudova obliva }elije horiona. Stepen razmene kroz takvu placentu je izuzetno visok.
Zbog svoje hranqivosti i visokog sadr`aja hormona placenta se upotrebqava u farmaceutskoj industriji za izradu krema za regeneraciju ko`e, zatim kao izvor hormona, ali i proteina koji se koriste kao markeri odre|enih tipova tumora.
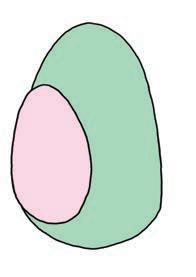
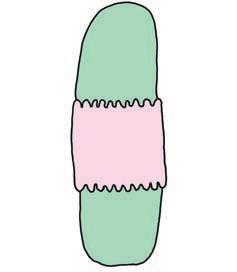
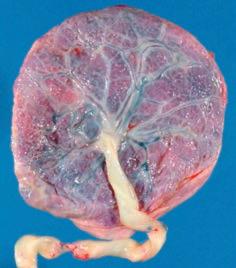
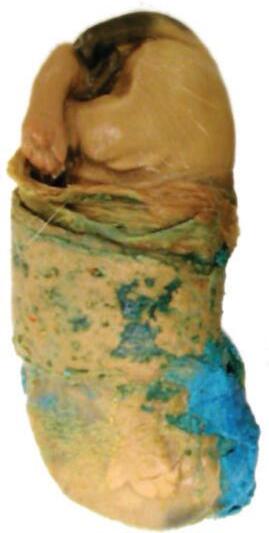
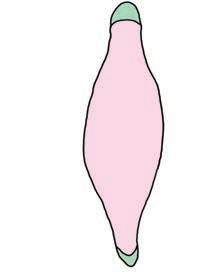
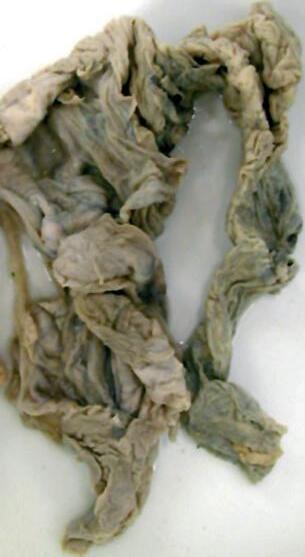
Vrste placenti
Pitawa i zadaci
1. Za{to se razvijaju ekstraembrionalni omota~i?
2. Nabrojte ekstraembrionalne omota~e i opi{ite ih.
3. Kako se formiraju ekstraembrionalni omota~i kod razli~itih vrsta koje ih poseduju?
4. U koju medicinsku svrhu se koristi amnionska te~nost?
5. Navedite vrste placenti.
6. Opi{ite gra|u placente na{e vrste.
Po zavr{etku embrionalnog razvi}a mladunci se ra|aju, odnosno izlegu. Oni su znatno mawi od roditeqa, a kod nekih vrsta uop{te ne li~e na wih, pa je potrebno da rastu, razvijaju se ili transformi{u i da preobraze svoj izgled kako bi dostigli izgled roditeqske vrste. Razvi}e se, dakle, ne zaustavqa okon~awem embrionalnog perioda, ve} se procesima posleembrionalnog razvi}a nastavqa do dostizawa izgleda adulta – polno zrele jedinke koja li~i na roditeqa. [tavi{e, ako se posmatraju i promene adultnih jedinki ve}ine vrsta, mo`e se zapaziti da one br`e ili sporije mewaju svoj izgled u procesu starewa. Razvi}e kao proces zapravo se nikada potpuno ne zavr{ava. Ono traje od nastanka do smrti jedinke. Za svaku vrstu karakteristi~no je kakvim }e se i koliko brzim promenama razvijati wene jedinke.
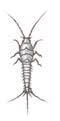
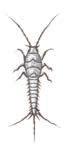
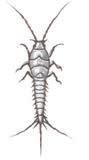
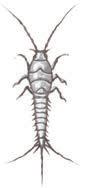
Iako razvi}e posle embrionalnog perioda odlikuje sve vrste, najve}i broj posleembrionalnih tipova razvi}a sre}e se kod insekata i vodozemaca. Kod insekata, iz zigota se prvo razvijaju polno nezreli stupwevi (larva, nimfa i lutka) koji se po izgledu i na~inu `ivota potpuno razlikuju od roditeqa. Postepenim rastom i remodelirawem tela oni posti`u izgled odrasle, adultne jedinke koja postaje polno zrela, sposobna da i sama daje potomstvo.
Po tome kako izgledaju nezreli stupwevi i koliko se wihovo telo mewa dok ne postanu adulti, razlikuju se slede}i tipovi posleembrionalnog razvi}a:


Rast i remodelirawe
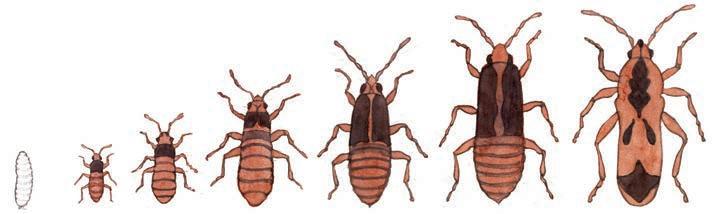
Nepotpuni preobra`aj
– rast i remodelirawe – najmawi stepen promena u izgledu tela; mladunci su minijaturni roditeqi (bebe u na{oj vrsti) koji, rastu}i, mewaju proporcije dok ne dostignu veli~inu tela roditeqa;
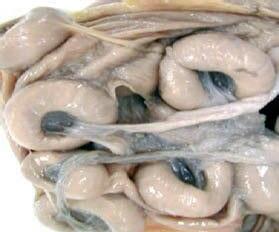
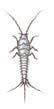
– nepotpun preobra`aj – umereni stepen promena izgleda; to je, na primer, postupno prola`ewe kroz stupweve nimfi, koje mewaju oblik i veli~inu tela do adulta, i karakteri{e najve}i broj insekata;
– potpun preobra`aj – velike promene u izgledu mladunca kroz posleembrionalne stupweve; leptir, na primer, prolazi stupweve larve i lutke do adulta, potpuno mewaju}i organizaciju tkiva i remodeliraju}i delove tela; potpun preobra`aj odlikuje i `abe; nezreo mladunac je punoglavac, koji potpuno remodelira telo (skoro svaki organ) da bi se transformisao u odraslu `abu.
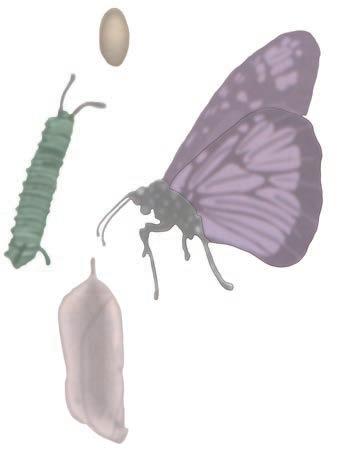
Potpuni preobra`aj kod leptira
Tela `ivotiwa podlo`na su mawim ili ve}im o{te}ewima i mogu se obnoviti regeneracijom. To ukqu~uje intenzivnu deobu }elija oko povrede, wihovo reorganizovawe i pokretawe, ~ime se povreda prepokriva i zarasta. Kod ve}ine vrsta regeneracija je delimi~na, tako da se mogu obnoviti tkiva (zarastawe rana na ko`i) ili mawe povrede organa ({krge, kqun, peraja).
Veoma mali broj vrsta zadr`ao je sposobnost da u adultnom stupwu u organizmu pokrene procese razvi}a koji su karakterisali embrion i u potpunosti nadoknadi povre|eni organ. Potpuna regeneracija sre}e se kod da`devwaka. Ukoliko da`devwak izgubi neki od ekstremiteta, mo`e da podra`ava embrionalni razvoj noge i sebi stvori novu. Zato se ova vrsta intenzivno prou~ava – u nadi da bi se mogao otkriti mehanizam potpune regeneracije ekstremiteta.
Jedini organ qudi koji ima pravu regenerativnu sposobnost jeste jetra. Poznato je da po odstrawivawu ~ak 70% tkiva, ona mo`e da se regeneri{e do svoje prvobitne veli~ine. Ova osobina jetre koristi se u transplantacijama.
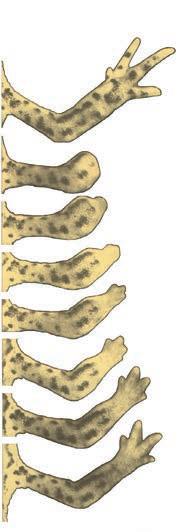
amputacija
7 dan
20 dan
25 dan
30 dan
45 dan nakon 2 meseca regeneracija
Regeneracija noge kod da`devwaka
Interesantno je podsetiti se da je regeneracija kakva se sre}e kod hidre, sun|era, morske zvezde i pqosnatih crva zapravo bespolno razmno`avawe
planarija
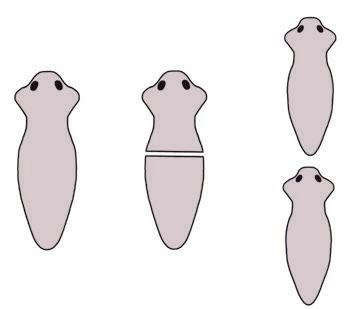
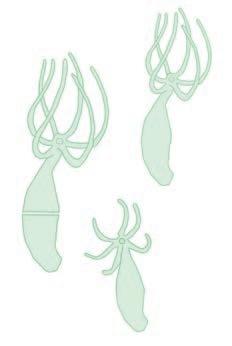
morska zvezda
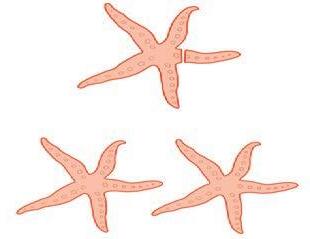
Sposobnost regeneracije kod pqosnatih crva (a), hidre (b) i morske zvezde (v)
Pitawa i zadaci
1. [ta je rast?
2. [ta je metamorfoza?
3. Navedite tipove posleembrionalnog razvi}a.
4. Navedite vrste koje imaju veliku regenerativnu sposobnost.
RAZMISLITE!
1.Za{to je regenerativna sposobnost u na{oj vrsti mala?
Svaki ~ovek svestan je procesa starewa. Okru`eni smo qudima razli~itog starosnog doba i znamo da se starewe jedinke okon~ava smr}u. S druge strane, zapa`amo i ve~itu te`wu ~oveka da „ostane mlad“, produ`i `ivotni vek ili, ~ak, postane besmrtan. Za{to ~ovek stari i kako se to de{ava kod ostalih vrsta `ivotiwa?
Svaka jedinka u genomu ima zapisan maksimalan `ivotni vek, koji je karakteristi~an za vrstu kojoj pripada i veoma se razlikuje od vrste do vrste. Za na{u vrstu on iznosi sto dvadeset i jednu godinu, za korwa~e se procewuje na najmawe sto pedeset godina, za kowe pedeset, pse oko dvadeset, `abe deset, a za laboratorijskog mi{a ~etiri i pô godine. Maksimalan `ivotni vek vo}ne mu{ice je tri meseca, a vilinog kowica samo jedan dan.
U prirodi je, me|utim, te{ko o~ekivati da svaka jedinka do`ivi prirodnu starost. Ve}ina vrsta `ivotiwa predstavqa hranu ili plen drugim vrstama i gotovo nikada ne do`ivi genski odre|enu du`inu `ivota. S druge strane, u na{oj vrsti zbog poboq{awa uslova `ivota, razvoja medicine i sve maweg broja ratova prose~na du`ina `ivota se pove}ava. U SAD je 1900. godine du`ina `ivota bila pedeset osam godina, 1960. sedamdest {est, a 1980 – osamdeset dve godine.
Uzroci starewa su raznovrsni i intenzivno se prou~avaju u okviru gerontologije – nauke o starewu. Postoji veliki broj teorija o tome za{to dolazi do starewa, ali nijedna od wih nije op{teprihva}ena.
Teorija nagomilavawa mutacija je najstarija teorija. Tokom `ivota u genomu dolazi do ne`eqenih promena na molekulima DNK (mutacije), koje se nagomilavaju do momenta kada nastupa trajno o{te}ewe }elija i smrt. Iako postoje eksperimentalni dokazi da se u }elijama sa starewem pove}avaju mutacije, ne postoje i dokazi da one izazivaju starewe. Na primer, kod pre`ivelih iz Hiro{ime i Nagasakija, uprkos ogromnom nagomilavawu mutacija posle eksplozije atomske bombe, nije do{lo do ubrzavawa procesa starewa.
Teorija skra}ivawa krajeva hromozoma. – Organizmi stalno obnavqaju ostarele i istro{ene }elije u tkivima tako {to deobama stvaraju nove. Ali sposobnost obnavqawa nije beskona~na – broj deoba je ograni~en (pedeset, na primer). Tokom tih deoba linearni molekuli DNK postepeno gube nukleotide na krajevima (oko sto nukleotida po deobi). Hromozomi se skra}uju, deobe se zaustavqaju, organizam gubi sposobnost obnavqawa i stari.
Teorija slobodnih radikala. – Tokom `ivota kao nusprodukti }elijskog metabolizma nastaju ne`eqeni, hemijski reaktivni molekuli – slobodni radikali. Oni reaguju sa gradivnim i funkcionalnim komponentama }elije (proteini, lipidi, ugqeni hidrati) i o{te}ujuih u procesima oksidacije. Slobodni radikali o{te}uju i molekule DNK, izazivaju}i mutacije
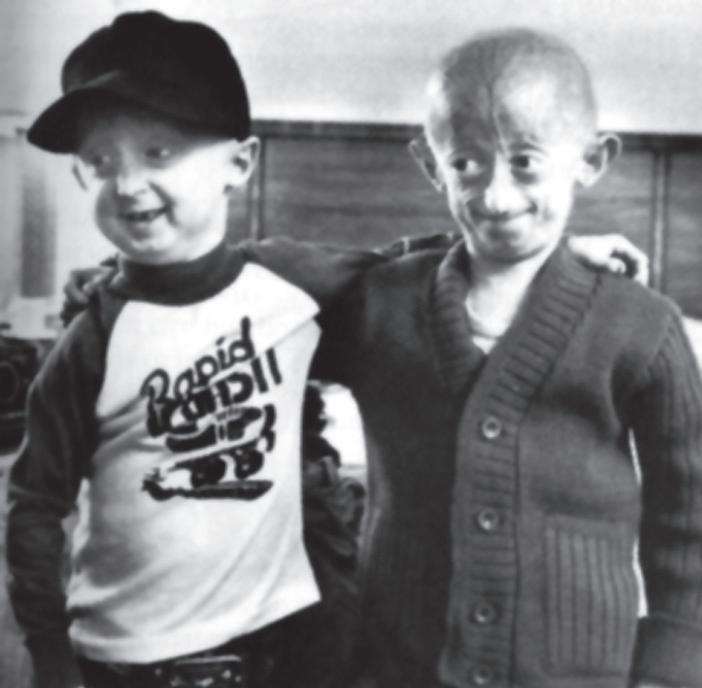
Teorija „genskog sata“. – Ova teorija postavqa pitawe da li je brzina starewa programirana za vrstu kao i du`ina `ivota. Postoji li „genski sat“ u na{im }elijama koji otkucava vreme `ivota? S obzirom na to da geni kontroli{u sve stupweve razvi}a, nema sumwe da u odre|enoj meri kontroli{u i starewe. Do sada je utvr|eno postojawe vi{e wih. Neki su geni za proteine, koji „popravqaju“ o{te}ewa na molekulu DNK. U medicini su poznati slu~ajevi (mada retki – samo dvadeset do sada opisanih) da, ukoliko nema tih gena (ili su nefunkcionalni), ubrzano se stari (progerija).
To su tzv. ostarela deca jer retko do`ive petnaest godina (a ne dosti`u adultni stupaw u fizi~kom razvoju i polnu zrelost).
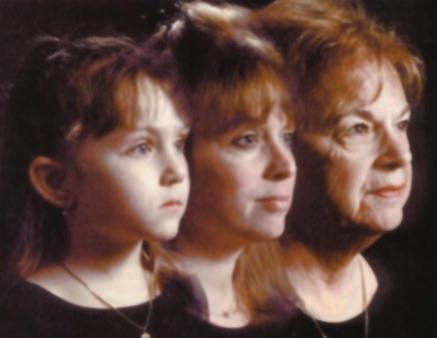
Starewe qudi najboqe se mo`e uo~iti u promenama na ko`i. S godinama ko`a postaje mawe elasti~na, bora se i opu{ta. Te promene najvi{e poga|aju `ensku populaciju jer ugro`avaju ideal lepote modernog dru{tva (elasti~na, zategnuta ko`a – bez bora). Poznato je da `ene kupuju kreme koje „zate`u“ ko`u, a pribegavaju i estetskim operacijama da bi poni{tile efekte starewa. Ali kako do wih dolazi?
Ko`a je lepa i zategnuta zahvaquju}i kolagenim i elasti~nim vlaknima u potko`nom vezivu. Kod beba i dece ta vlakna se stvaraju
u velikim koli~inama zato {to je u toku intenzivan rast. Kada rast prestane, stvarawe kolagena i elastina (gradivnih molekula ovih vlakana) mnogo je sporije, tako da se o{te}eni molekuli te{ko zamewuju.
Slobodni radikali najvi{e o{te}uju vlakna, dovode do wihovog kidawa i nepravilnog povezivawa. Time ko`a gubi elasti~nost i stvaraju se bore. Veliki broj preparata „protiv starewa“ zasniva se na pomo}i ko`i da obnovi o{te}ene molekule. Ako se pogleda sastav ve}ine krema, mo`e se uo~iti da one sadr`e upravo kolagene i elastine.
[tetno delovawe slobodnih radikala unutar organizma mo`e se ubla`iti, pri ~emu se preporu~uje veliki broj prirodnih i sinteti~kih preparata pod nazivom antioksidansi Najpoznatiji su vitamini, naro~ito S i E.
Pitawa i zadaci
1. Defini{ite maksimalan `ivotni vek i objasnite od ~ega on zavisi?
2. Za{to se prose~na du`ina `ivota ~oveka pove}ava tokom evolucije?
3. Objasnite proces starewa?
RAZMISLITE!
1.Na koji se na~in mo`e usporiti ili mo`da zaustaviti starewe?
Sobzirom na to da na{a vrsta pripada carstvu `ivotiwa, osnovni principi razvi}a qudi sli~ni su kao kod ostalih vrsta. Razmno`avawe je polno, gametogeneza se odvija u jajnicima i semenicima, a oplo|ewe je unutra{we. Embrionalni i fetalni period razvi}a u telu majke traju od trideset osam do ~etrdeset nedeqa. Qudsko mladun~e – beba –dolazi na svet ro|ewem i nastavqa posleembrionalno razvi}e rastom u detiwstvu i postizawem polne zrelosti (pubertet). Tako se zatvara krug `ivota – od roditeqa do potomaka koji su sposobni da i sami postanu roditeqi.
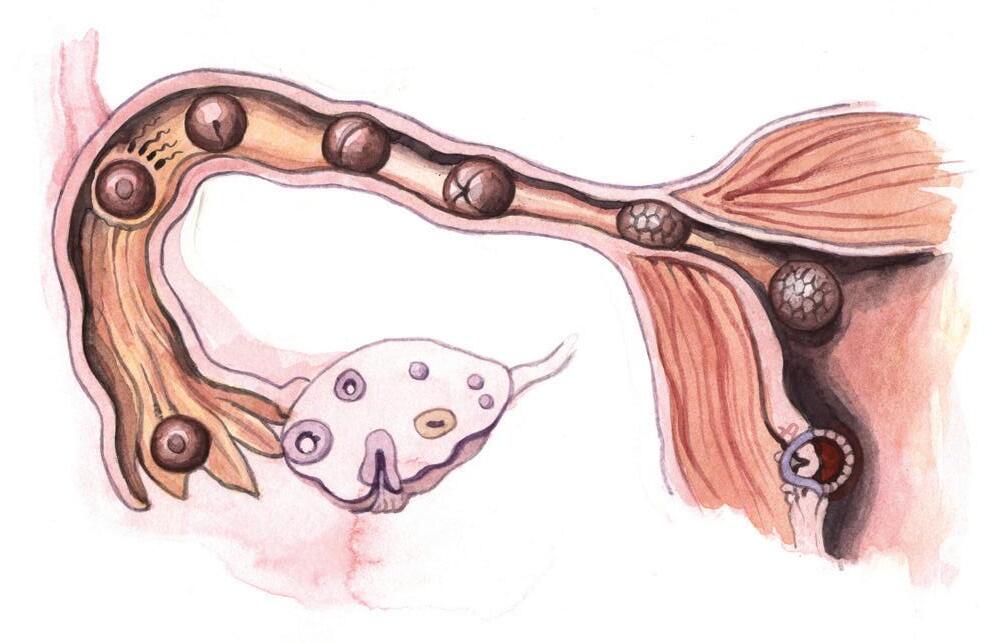
Gametogeneza. – @enske bebe se ra|aju sa oko dva miliona primarnih oocita u jajnicima. Do sedme godine taj broj se smawi na trista hiqada. Od puberteta (po~etka sazrevawa jajnih }elija) do menopauze samo ~etiri stotine }e sazreti i biti oslobo|ene u jajovod. Vreme dostizawa polne zrelosti kontroli{u hormoni estrogen, folikulostimuliraju}i, luteiniziraju}i hormon i progesteron. Oni se stvaraju i lu~e cikli~no, u periodu koji prose~no traje dvadeset osam dana, tj. u menstrualnom ciklusu. Naime, polna zrelost za `enu ne zna~i samo sposobnost pokretawa oogeneze i stvarawa jajnih }elija ve} i pripremu tkiva uterusa za implantaciju embriona ako do oplo|ewa do|e. Zato se prvih dvanaest dana menstrualnog ciklusa u ovarijumu i uterusu uporedo odvijaju promene.
U jajniku se jedna ili nekoliko primarnih oocita, pod dejstvom folikulostimuliraju}eg i luteiniziraju}eg hormona, podsti~u da nastave prvu mejoti~ku deobu u kojoj su bile zaustavqene tokom embrionalnog razvi}a. Posle prve, sekundarna oocita }e zapo~eti drugu mejoti~ku deobu i ponovo se zaustaviti.
prva deoba zigota
jajovod stupwevi od 2 i 4 blastomere oplo|ewe
rano brazdawe kasno brazdawe
folikuli
jajna }elija
blastocist
implantacija
jajnik `uto telo ovulacija
Uporedo s deobama oocite, i folikularne }elije oko we se dele i uve}avaju svoj broj, tako da folikul u kome se oocita nalazi raste. Osim {to imaju funkciju ishrane oocite, neke }elije folikula lu~e estrogen, dok druge lu~e te~nost koja }e polako ispuwavati unutra{wost folikula. Promene u koncentraciji hormona dovode do dodatnog bubrewa folikula i on ~etrnaestog ili petnaestog dana ciklusa, prska izbacuju}i sekundarnu oocitu – zrelu jajnu }eliju u jajovod.
Kod mu{karaca se u semenicima spermatogenezom stvaraju haploidni spermatozoidi. Ejakulacijom sperme (koja predstavqa me{avinu spermatozoida, semene te~nosti i sekreta prostate) od sto pedeset do trista pedeset miliona spermatozoida biva uba~eno u vaginu. Samo wih stotinak dospe}e do jajovoda, gde se sre}u s jajnom }elijom i dolazi do oplo|ewa
Akrozomalnom reakcijom osloba|aju se enzimi koji „prave“ put spermatozoidu ka membrani i on prodire u jajnu }eliju. Istovremeno, jajna }elija zavr{ava drugu mejoti~ku deobu i stvara haploidni nukleus. Spajawem s mu{kim nukleusom nastaje zigot. Kortikalnom reakcijom stvara se fertilizacioni omota~ i tako se blokira ulazak drugih spermatozoida.
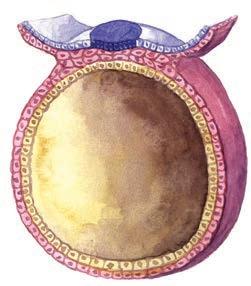
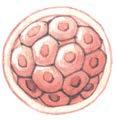
Razvi}e qudskog embriona od oplo|ewa do ro|ewa prose~no traje dvesta {ezdeset i {est dana. Brazdawe otpo~iwe dan posle oplo|ewa, tako da nastaju 2, 4, 8 ... }elija. Posle 96 ~asova stvori se lopta od trideset dve }elije koja li~i na dudiwu. Razmicawem blastomera nastaje blastula – blastocist, sa slojem }elija na povr{ini – trofoblastom, blastocelom i jednom unutra{wom }elijskom masom. Tog trenutka fertilizacioni omota~ vi{e nije potreban i on nestaje (degeneri{e se).
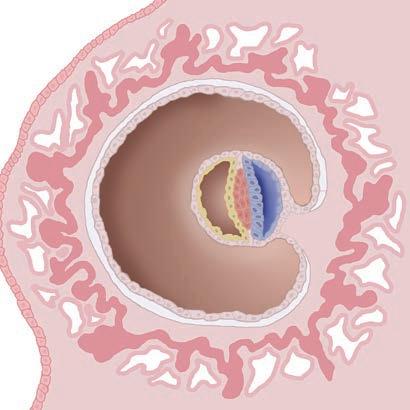
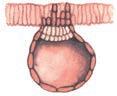
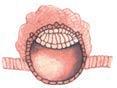
Brazdaju}i se, embrion se polako spu{ta niz jajovod i {estog ili sedmog dana od oplo|ewa sti`e u uterus. Trofoblastne }elije u po~etku hrane embrion tako {to razla`u sekret `lezda materice. Kasnije, trofoblast se prika~i za povr{inu materice i enzimima razla`e weno tkivo da bi se usadio – implantirao. Unutra{wa masa }elija otpo~iwe gastrulaciju, a embrion stvara amnion i `umancetnu kesu. Tre}e nedeqe horion i alantois formiraju placentu. Sve se to desi do vremena kada `eni izostane menstruacija i ona posumwa na trudno}u.
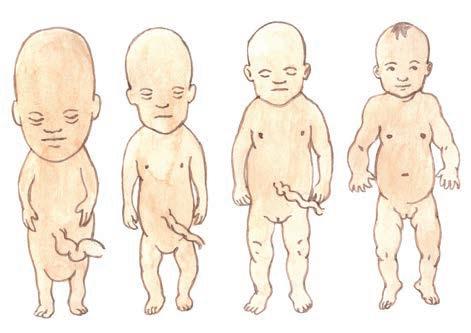
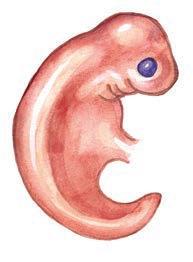
Organogeneza napreduje tokom tre}e i ~etvrte nedeqe. Na kraju ~etvrte nedeqe embrion je pet stotina puta ve}i u odnosu na po~etnu veli~inu (na embrionu dominira glava, a uo~avaju se o~i i za~eci ekstremiteta). Embrionalni period zavr{ava se osmom nedeqom. U ranom fetalnom periodu – od 8. do 28. nedeqe –razvi}e ukqu~uje rast organa i celog organizma, tako da je na kraju tog perioda fetus duga~ak oko trideset centimetara i te`ak oko {esto grama. Ve}ina organa je formirana. Krajem petog meseca pomo}u stetoskopa se jasno mo`e ~uti sr~ani ritam fetusa. Kasni fetalni period – od 28. nedeqe do ro|ewa – odlikuje se potpunim uobli~avawem tela fetusa do qudskog oblika i
spermatozoidi vitelinski omota~
folikularne }elije
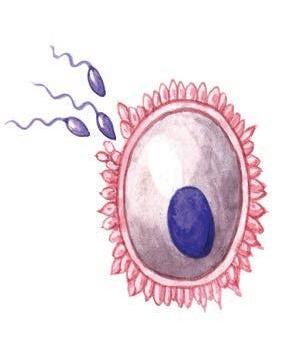
jajna }elija
Oplo|ewe
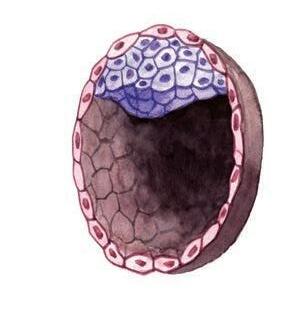
unutra{wa }elijska masa trofoblast
Blastula – blastocist
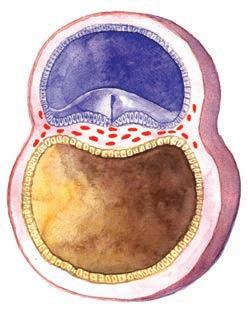
ektoderm
Rana gastrulacija
migrirawe }elija mezoderma endoderm neuroektoderm notohorda
Kasna gastrulacija
intenzivnim rastom kostiju. Te`ina se vi{estruko uve}ava (neke bebe su na ro|ewu te{ke i pet kilograma), a du`ina dosti`e oko pola metra.
Ro|ewe podsti~e sam fetus: placenta lu~i hormone koji kontrahuju mi{i}e uterusa. Du`ina poro|aja zavisi od mnogih faktora. Poro|aj mo`e da traje nekoliko ~asova, a ponekad i vi{e od 24 ~asa. Uprkos tome {to je za budu}u majku relativno bolan, prirodan, nestimulisan poro|aj je najbezbedniji i za majku i za dete. Posle poro|aja placenta se odvaja od zida uterusa i kontrakcijama biva potisnuta i izba~ena. Pup~ana vrpca jo{ uvek je u vezi s novoro|en~etom i treba je odstraniti. Mali deo pup~ane vrpce koji ostane povla~i se u trbu{ni zid i postaje pupak.
Novoro|en~e je minijaturni adult koji raste i za dva meseca obi~no udvostru~i te`inu. Najzna~ajniji faktor rasta posle ro|ewa jeste maj~ino mleko (hrana mladunaca sisara). Osim {to je hranqivo, maj~ino mleko sadr`i i antitela za odbranu beba od infekcija.
Tokom detiwstva organi rastu najvi{e deobom }elija, a mawe uve}avawem samih }elija. Rast organa i tela je prividno proporcionalan: neki organi se razvijaju br`e, a neki sporije. Proporcije deteta nisu iste kao kod adulta. Glava je, na primer, i posle ro|ewa najve}a na telu i raste znatno sporije od ostalih delova tela. Ovakav na~in rasta ozna~ava se kao alometrijski.
nervna cev notohorda
Morfogeneza – organogeneza
8 12 16 ro|ewe 2 5 15 odrasla osoba
embrionalni i fetalni period razvi}a (u nedeqama)
posleembrionalni period razvi}a (u godinama)
Alometrijski rast
Dominirawe glavenog regiona tokom fetalnog razvoja i po ro|ewu posledica je specifi~nog rasta mozga ~oveka. Iako je intenzivno rastao tokom embrionalnog razvi}a, mozak nastavqa da raste i nekoliko godina posle ro|ewa, uspostavqaju}i pun intelektualni
kapacitet. Zato je veoma va`no da u prvim godinama `ivota beba bude pravilno hrawena, okru`ena pa`wom, qubavqu i sigurno{}u, jer sve to uti~e na razvoj intelektualnog potencijala deteta.
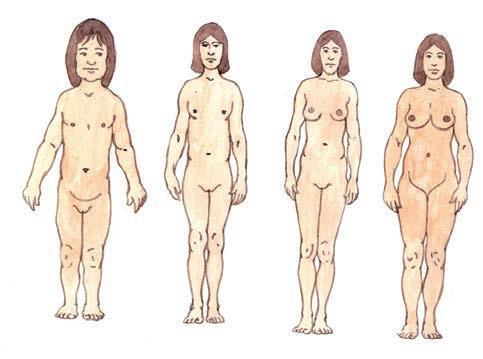
Slede}i va`an period u razvi}u jeste period dostizawa polne zrelosti i sposobnosti za reprodukciju. Pubertet je period burnih promena organizma, kada se polni dimorfizam ispoqava sekundarnim polnim karakteristikama i pokre}e specifi~no polno pona{awe.
Kao {to je ve} re~eno, razvi}e kao proces traje do kraja `ivota individue. Za to vreme ona sama stvara potomke i stari.
Iako je stvarawe potomstva prirodan ~in kojem qudska vrsta biolo{ki te`i, razvoj dru{tva je umnogome promenio na{ odnos prema potomstvu. Pogledajmo samo koliko je moderna civilizacija „pomerila“ klasi~an pristup humanoj reprodukciji, na primer, starost `ena u vremenu kada postaju majke, broj potomaka, odnos prema ro|enom i usvojenom detetu, ve{ta~kom oplo|ewu, abortusu, klonirawu i sl.
EMBRIONALNI PERIOD
nedeqe: 1 2 3 4 5 6 7 8
brazdawe, implantacija, rana gastrulacija budu}e srce budu}e oko

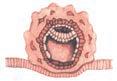
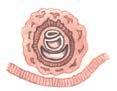
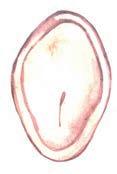
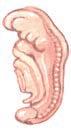
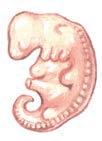
za~eci udova
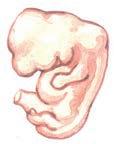
budu}e uvo formirawe nepca
spoqne genitalije zubi budu}i mozak
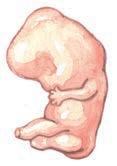
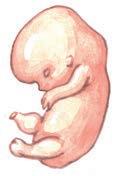
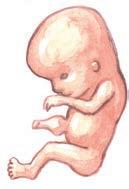
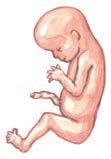
spoqne genitalije
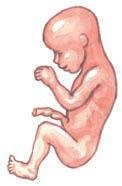
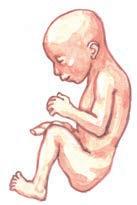
Humano razvi}e
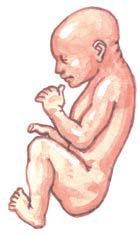
Qudski embrion u ranoj trudno}i veoma je osetqiv na mnogobrojne uticaje koji dolaze iz tela majke ili iz spoqa{we sredine. Uzimawe lekova, virusne i bakterijske infekcije, izlo`enost zra~ewu, nepravilna ishrana – samo su neki od wih. Poznato je da su pojedine trudnice {ezdesetih godina pro{log veka uzimale preparat talidomid da ubla`e neprijatne ose}aje privikavawa na trudno}u. Na`alost, nedovoqno testiran preparat spre~avao je razvoj ekstremiteta, tako da su se ra|ala deformisana deca, bez ruku i/ili nogu. Virusna infekcija koja kod dece izaziva jednu vrstu bogiwa, kod trudnica do drugog meseca izaziva nepravilnost u razvoju ploda i poba~aj. Izlo`enost zra~ewu ne samo da {kodi majci ve} dovodi i do brojnih hromozomskih poreme}aja embriona. Kao rezultat, mo`e do}i do poba~aja, ra|awa mrtvog deteta ili razli~itih hromozomskih poreme}aja. Nepravilna ishrana, pu{ewe i konzumirawe alkohola u trudno}i dovode do poba~aja, smawewa te`ine novoro|en~eta ili do zastoja u embrionalnom razvi}u.
Pitawa i zadaci
1. Sa kolikim prose~nim brojem jajnih }elija se rodi `enska beba?
2. Koliko jajnih }elija prose~no iskoristi svaka `ena tokom reproduktivnog perioda?
3. Koliko traje reproduktivni period `ene, a koliko mu{karca?
4. Navedite hormone koji kontroli{u dostizawe i odr`avawe polne zrelosti.
5. Na koji na~in jajna }elija iz Grafovog folikula dospeva u jajovod?
6. Opi{ite izgled jajne }elije u jajovodu.
7. Koliko traju embrionalni i fetalni period razvi}a?
8. Opi{ite ukratko razvoj humanog embriona.
9. Koliko biste potomaka `eleli da imate i za{to?
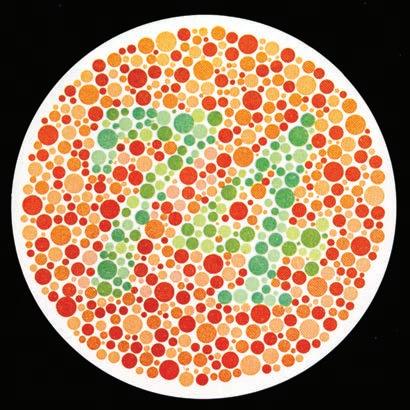
Za{to potomci li~e na roditeqe? Za{to postoje razlike? Nasle|ivawem i varijabilno{}uosobina(lat. variabilis –promenqiv)bavi se nauka koja se naziva genetika. Ona prou~ava kako se osobine nasle|uju, kako se nasledna informacija prenosi kroz generacije, kako se odr`ava, ispoqava i mewa. Razumevawe procesa nasle|ivawa i promenqivosti neophodno je za razumevawe samog `ivota, odr`awa wegovog kontinuiteta i raznovrsnosti. Zato je genetika tesno povezana s drugim biolo{kim disciplinama.
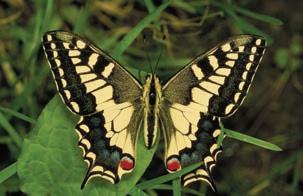
Nasledna uputstva za hiqade razli~itih osobina prenose se kroz generacije.
Izu~avawe nasle|ivawa ima dugu i bogatu istoriju. Iako se ne zna kada su qudi prvi put uo~ili preno{ewe osobina s roditeqa na potomke, tradicija gajewa biqaka i `ivotiwa prote`e se hiqadama godina u pro{lost. Tada je ve} do{lo do prvog ve{ta~kog odabirawa razli~itih geneti~kih varijanata. Danas genetika ima rastu}i zna~aj i u budu}nosti }e sve vi{e uticati na na{ svakodnevni `ivot.
U geneti~kim istra`ivawima primewuju se razli~iti pristupi. Ona se izvode na najrazli~itijim vrstama organizama i na razli~itim nivoima biolo{ke organizacije, po~ev od molekularnog nivoa.
Obrasci nasle|ivawa mogu se prou~avati na vi{e na~ina. Klasi~an istra`iva~ki pristup je da se prou~ava transmisiona genetika (lat. transmissio – preno{ewe), tj. na~in preno{ewa osobina iz generacije u generaciju. Taj pristup se zasniva na eksperimentalnim ukr{tawima, a preno{ewe osobina s roditeqa na potomke prati se kroz nekoliko generacija. Prve eksperimente ovog tipa izveo je Mendel sredinom XIX veka. Wegov rad je bio od presudnog zna~aja za razumevawe nasle|ivawa i postavio je temeqe transmisione genetike.
Kod qudi, po{to ne mo`e biti kontrolisanog eksperimentalnog ukr{tawa, primewuje se drugi metod – analiza rodoslovnog stabla (o kojoj }e biti re~i kasnije). Tu se odre|ena osobina prati kroz vi{e generacija kako bi se utvrdio na~in wenog preno{ewa.
Prou~avawa na citogeneti~kom nivou po~ela su otkri}em hromozoma u XIX veku. Posebne tehnike bojewa hromozoma omogu}ile su da se mnogo sazna o wihovom broju, izgledu, promenama do kojih mo`e do}i u wihovoj gra|i ili broju, o posledicama tih promena i na~inu na koji se prenose na potomke.
Slede}i pristup ukqu~uje analizena molekularnom nivou. To je otvorilo potpuno nove oblasti istra`ivawa i uticalo na ogroman porast znawa o genetici tokom posledwih nekoliko decenija. Prve takve studije zapo~ete su na bakterijama i virusima. Danas je poznat precizan nukleotidni sastav velikog broja gena kod razli~itih grupa organizama, a otkri}a u ovoj oblasti slu`e kao osnova za razvoj novih tehnologija koje }e u velikoj meri uticati na budu}nost na{e vrste. Populacionogeneti~ki pristup podrazumeva analizu na nivou populacija: kako se razli~ite geneti~ke varijante javqaju u populacijama organizama, kako i za{to se neke od wih odr`avaju u populaciji, dok druge vremenom nestaju, koji procesi uti~u na to, koliko se populacije razlikuju po svojoj geneti~koj strukturi. Populaciona genetika omogu}ava, tako|e, da procenimo kakva }e biti geneti~ka struktura populacije u slede}im generacijama.
Veliki uticaj geneti~kih istra`ivawa na razli~ite oblasti na{eg `ivota naro~ito je uo~qiv kad su u pitawu medicina i poqoprivreda. Savremena biotehnologija mnogostruko je pro{irila istra`iva~ke mogu}nosti i podru~ja primene, poja~av{i jo{ vi{e taj uticaj. Spomenu}emo samo neke primere: razja{wewe osnove mnogih naslednih bolesti (istra`iva~i su identifikovali gene odgovorne za veliki broj naslednih bolesti kod ~oveka), kao i nekoliko velikih dostigu}a u proizvodwi lekova – neki medicinski va`ni produkti, kao {to su humani insulin ili hormon rasta, proizvodi su kloniranih gena. Ve}i prinosi u poqoprivredi, neophodni u uslovima naglog pove}awa broja stanovnika u svetu, posti`u se zahvaquju}i primeni razli~itih geneti~kih metoda, a naro~ita pa`wa posve}uje se genima koji obezbe|uju otpornost prema bolestima ili {teto~inama.
Qudi su od davnina prime}ivali da se osobine prenose s roditeqa na potomstvo, ali mehanizam tog nasle|ivawa nije bio poznat. Mislilo se da se osobine nasle|uju tako {to dolazi do me{awa telesnih te~nosti, a time i do me{awa, odnosno stapawa roditeqskih osobina u potomstvu.
Prvi pravi uvid u mehanizme nasle|ivawa biolo{kih osobina omogu}ili su pomenuti eksperimenti Gregora Mendela na biqkama. Mendel je dokazao da pri nasle|ivawu ne dolazi do me{awa, ve} da svaki roditeq daje potomstvu odre|ene faktore – nasledne jedinice, koje su kasnije nazvane geni. Zakqu~io je da te zasebne, specifi~ne nasledne jedinice odre|uju pojedine osobine i prenose se kroz generacije, sa roditeqa na potomke. Ipak, wegovi radovi ostali su prakti~no nezapa`eni sve do po~etka XX veka, kada ih je nau~na zajednica otkrila i uo~ila wihov zna~aj. To je ozna~ilo po~etak savremene nauke o nasle|ivawu.
Mendel je prvi primenio nove metode u prou~avawu nasle|ivawa. Iako poreklom iz siroma{ne porodice, stekao je odli~no obrazovawe, naro~ito iz oblasti prirodnih nauka i filozofije. Kasnije je stupio u manastir u Brnu (dana{wa ^e{ka). Tamo je, u manastirskoj ba{ti, zapo~eo s eksperimentima na gra{ku, poku{avaju}i da otkrije kako se individualne osobine nasle|uju. Rezultate vi{egodi{weg rada objavio je 1866. godine, ali oni nisu bili zapa`eni niti priznati za wegovog `ivota. Tek 1900. godine trojica nau~nika su, bave}i se istom problematikom, ponovo otkrila Mendelov rad. Ovo otkri}e pobudilo je veliko interesovawe. U periodu procvata geneti~kih istra`ivawa koji je zatim usledio, jedan od prvih koraka je bio da se istra`i da li Mendelova pravila nasle|ivawa va`e i kod `ivotiwa.
Gregor Mendel (1822–1884)
Za{to je Mendel uspeo tamo gde drugi nisu? Mnogi nau~nici pre wega poku{avali su da otkriju kako se osobine nasle|uju. Ukr{tali su biqke ili `ivotiwe i pratili op{tu sli~nost izme|u roditeqa i potomaka. Rezultati su, naravno, bili zbuwuju}i. Potomstvo je li~ilo na jednog od roditeqa po nekim osobinama, na drugog roditeqa po drugim, dok su neke osobine bile druga~ije od roditeqskih, tako da nisu mogli da uo~e pravila.
Me|utim, Mendel je primenio potpuno druga~iji pristup: pratio je pojedina~ne osobine, precizno planirao eksperimente i rezultate obradio kvantitativno – odre|ivao je proporciju u kojoj se u potomstvu javqaju nosioci razli~itih oblika jedne osobine. Pored toga, izabrao je pogodnu vrstu za eksperimente – biqku koja se lako gaji i jednostavno ukr{ta.
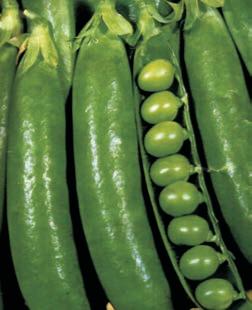
Mendel je ukr{tao linije gra{ka koje su se jasno razlikovale po odre|enim osobinama, odnosno imale su alternativne oblike tih osobina, kao {to su `uto ili zeleno zrno, okruglo ili naborano zrno, qubi~ast ili beo cvet, visoka ili niska stabqika itd. Pratio je kako se svaka od tih osobina nasle|uje kroz generacije –da li se alternativni oblici osobine gube ili se zadr`avaju i u kojim se odnosima (proporcijama) javqaju u potomstvu. Takvo ukr{tawe, pri kojem se kroz generacije prati samo jedna osobina s alternativnim oblicima, nazvano je monohibridno ukr{tawe.
Kao primer takvog ukr{tawa mo`e se uzeti boja zrna gra{ka. Mendel je ukrstio biqke koje su imale `uta zrna sa onima ~ija su zrna bila zelena (pre toga je spre~io samooplo|ewe u roditeqskim linijama). Na slici upotrebqene su uobi~ajene oznake za generacije: sa P je ozna~ena roditeqska (parentalna) generacija, a sa F potoma~ka generacija (lat. filius, filia – sin, k}i); tako je F1 prva potoma~ka generacija, F2 druga itd. U prvoj potoma~koj generaciji (F1) sva zrna su bila `ute boje. Me|utim, u drugoj potoma~koj generaciji (F2) pojavila su se oba oblika osobine – bilo je i `utih i zelenih zrna, s tim {to je `utih bilo mnogo vi{e. Mendel je utvrdio da se `uta i zelena zrna javqaju u proporciji 3 : 1 (pribli`no).
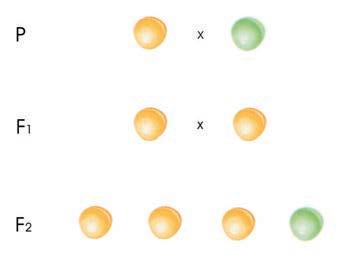
Takav odnos u~estalosti dobio je i za ostale osobine koje je ispitivao. Po{to je uo~io tu pravilnost, dao je hipotezu o na~inu nasle|ivawa koja obja{wava ovakve eksperimentalne rezultate.
Mendel je zakqu~io da su osobine koje je ispitivao odre|ene naslednim faktorima (kasnije nazvanim geni) koji se prenose s roditeqa na potomstvo preko gameta i ne gube identitet u procesima razmno`avawa. Dva nasledna faktora za jednu osobinu se ne spajaju niti me{aju
na bilo koji na~in, ve} ostaju tokom `ivota jedinke, razdvajaju}i se pri formirawu gameta. Tom prilikom se odvajaju slu~ajno, tako da polovina gameta nosi jedan, a druga polovina drugi faktor. Ovo je poznato kao pravilo razdvajawa
Svaki taj faktor (gen) mo`e da postoji u alternativnim oblicima – alelima, koji su odgovorni za alternativne oblike odre|ene osobine. U Mendelovom eksperimentu za svaku od ispitivanih osobina biqka je dobila dva alela, po jedan od svakog roditeqa. Drugim re~ima, jedan alel dobijen je preko gameta mu{kog, a drugi – preko gameta `enskog roditeqa.
Prema savremenoj geneti~koj terminologiji, Mendelove jedinice nasle|ivawa nazivaju se geni, a geni mogu da postoje u vi{e razli~itih formi, odnosno alela. Geneti~ari upotrebqavaju odre|ene simbole da bi ih ozna~ili. Na primer, sa A i a ozna~eni su aleli gena za boju zrna gra{ka (koristi se isto slovo jer je re~ o razli~itim oblicima istog gena).
Ukoliko postoje dve varijante (dva alela) jednog gena, one u potomstvu mogu da se pojave u tri razli~ite kombinacije: u dve kombinacije su oba alela ista (u navedenom primeru to bi bili AA i aa) i nazivaju se homozigoti, a u jednoj su aleli razli~iti (Aa) – i to je heterozigot. Dakle, homozigot (gr~. homos – isti) predstavqa jedinku kod koje su dva alela za odre|enu osobinu identi~na, dok je heterozigot (gr~. heteros – razli~it) jedinka kod koje su dva alela za odre|enu osobinu razli~ita.
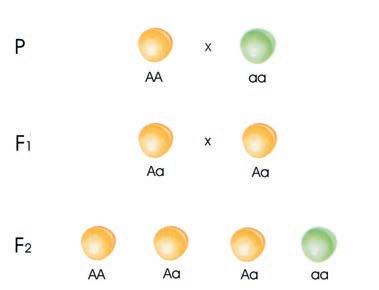
Mendelov eksperiment – slovima A i a ozna~eni su aleli gena za boju zrna.
Mendel je, tako|e, zapazio da alel za zelenu boju zrna nije bio izgubqen u F1 generaciji iako se nije ispoqio. To je va`ilo i za ostale osobine koje je prou~avao. Zakqu~io je, ukoliko se dve razli~ite varijante naslednog faktora za istu osobinu (dva razli~ita alela) na|u kod iste jedinke, jedan }e se ispoqiti, a drugi ne}e. Onaj koji se ispoqi je dominantan (lat. dominans – koji vlada, nadmo}an), a onaj koji ostane skriven – recesivan. Uobi~ajeno je da se dominantan alel obele`ava velikim, a recesivan malim slovom. Tako smo u na{em primeru koristili oznaku A za dominantni alel (odgovoran za `utu boju) i a za recesivni alel (odgovoran za zelenu boju).
Kod heterozigota, koji imaju i dominantan i recesivan alel, ispoqava se onaj oblik osobine koji odre|uje dominantan alel, a ostaje prikriven, ne ispoqava se, onaj koji odre|uje recesivan alel.
Po~etkom XX veka u genetiku su uvedeni jo{ neki va`ni pojmovi s kojima }emo se ~esto susretati. To su fenotip i genotip. Fenotip neke jedinke ~ine wene osobine – morfolo{ke, fiziolo{ke, osobine pona{awa i ostale. Naziv poti~e od gr~ke re~i fenomenon (pojava) jer se odnosi na osobine koje se mogu uo~iti i posmatrati. Ovaj termin ima {ire i u`e zna~ewe. U {irem zna~ewu, fenotip se odnosi na skup svih osobina nekog organizma; u u`em zna~ewu –odnosi se na odre|enu osobinu.
Pod genotipom se podrazumeva geneti~ka konstitucija jedinke. Mo`e se, tako|e, koristiti u {irem zna~ewu, kada se odnosi na skup svih gena, ili u u`em zna~ewu, kada se odnosi samo na posmatrani gen (ili gene). Recimo, u navedenom primeru s gra{kom pojam genotip odnosi se na gen za boju zrna i, s obzirom na kombinaciju alela, mo`e biti AA, Aa ili aa Odnos izme|u genotipa i fenotipa nije jednostavan kao {to bi se moglo pomisliti na osnovu prethodnih primera. Fenotip je rezultat slo`enih interakcija izme|u razli~itih gena, kao i izme|u gena i sredine. Jedinke nemaju identi~an fenotip u pogledu svih osobina,
mada on mo`e da bude isti kada se posmatraju samo jedna ili nekoliko osobina. Na primer, veliki broj jedinki gra{ka ima istu boju zrna, veliki broj qudi istu krvnu grupu ili boju o~iju.
Jedinke istog fenotipa (u pogledu odre|ene osobine) mogu da imaju razli~it genotip. Od svih jedinki gra{ka sa `utim zrnom u Mendelovom eksperimentu, neke su bile homozigoti (AA), a neke heterozigoti (Aa).
Osim toga, jedan genotip mo`e dati razli~ite fenotipove u razli~itim sredinama. Za to postoji mnogo primera me|u biqkama i `ivotiwama. Tako biqka vodeni quti} ima li{}e vrlo razli~itog oblika – u zavisnosti od toga da li se listovi nalaze u vodenoj ili vazdu{noj sredini.
U opisanom eksperimentu u pitawu je bilo ukr{tawe linija koje su se razlikovale samo u jednoj osobini, odnosno u alelima jednog gena. Me|utim, mo`e se pratiti i preno{ewe vi{e osobina istovremeno. Recimo, Mendel je ukr{tao i biqke koje su se razlikovale u dvema osobinama. Takvo ukr{tawe naziva se dihibridno Na osnovu tih rezultata on je formulisao pravilo nezavisnog kombinovawa (raspore|ivawa): geni za razli~ite osobine raspore|uju se u gamete i nasle|uju nezavisno jedan od drugog. Tako se u potomstvu pojavquju i nove kombinacije osobina, kakvih nije bilo kod roditeqa. Kasnije se pokazalo da to pravilo nezavisnosti va`i za gene koji se nalaze na razli~itim hromozomima.
Kao ilustraciju dihibridnog ukr{tawa mo`emo navesti jo{ jedan primer s gra{kom. Pratimo nasle|ivawe dve osobine: boje cveta i visine stabqike. Boja cveta mo`e da bude qubi~asta i bela; qubi~asta je dominantna. Po visini, biqke su visoke i niske; nizak rast („patuqasta“ forma) recesivna je osobina.
U roditeqskoj generaciji ukr{taju se ~iste linije, homozigotne za te osobine: visoke biqke s qubi~astim cvetovima ukr{taju se s niskim biqkama koje imaju bele cvetove. Dobijeni rezultati prikazani su na slici. U prvoj potoma~koj (F1) generaciji sve biqke su visoke i imaju qubi~aste cvetove jer su obe ove osobine dominantne. U drugoj generaciji (F2) dobijaju se ~etiri razli~ita fenotipa: visoke biqke qubi~astih cvetova, visoke biqke belih cvetova, niske biqke qubi~astih cvetova i niske biqke belih cvetova, u odnosu 9 : 3 : 3 : 1.
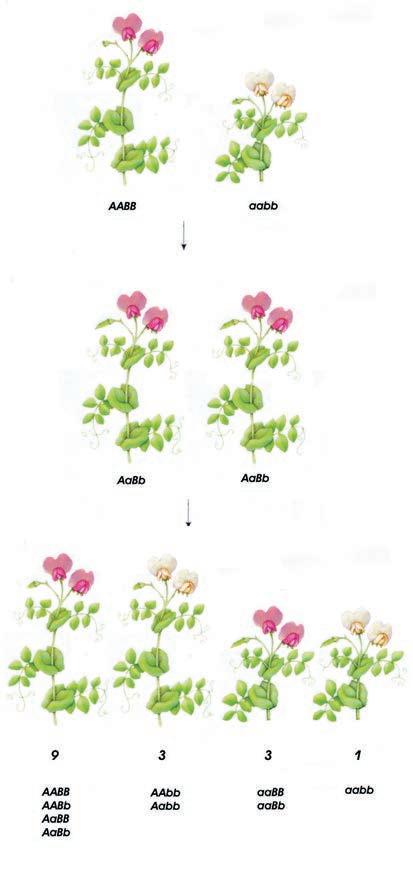
Nasle|ivawe visine stabqike i boje cveta (A i a ozna~avaju alele gena za visinu, a B i b alele gena za boju cveta).
Do sada je bilo re~i o najjednostavnijem slu~aju nasle|ivawa – kada jedan par alela odre|uje jednu osobinu. Me|utim, taj odnos mo`e da bude (naj~e{}e i jeste) mnogo slo`eniji: jedan gen mo`e u~estvovati u kontroli vi{e osobina ili mnogi geni mogu u~estvovati u kontroli samo jedne osobine. Osim toga, neki geni imaju vi{e od dva alela, a i odnosi me|u alelima mogu da budu druga~iji nego u opisanim eksperimentima, kao {to }emo videti u slede}im primerima.
Sve osobine na kojima je Mendel radio pokazivale su potpunu dominansu. Me|utim, kod mnogih osobina dominansa je nepotpuna. Primer za to je boja cveta zevalice. Kada se biqka s crvenim cvetom ukrsti sa onom koja ima beli cvet, sve potoma~ke (F1) biqke ima}e ru`i~aste cvetove. Da li to zna~i da je do{lo do me{anog nasle|ivawa? Ne, jer se u F2 generaciji javqaju biqke s crvenim, ru`i~astim i belim cvetovima u odnosu 1 : 2 : 1
Obja{wewe le`i u ~iwenici da se kod heterozigota ispoqavaju oba alela, pa ga mo`emo razlikovati od homozigota jer daje druga~iji fenotip.
Takav primer kod qudi je MN sistem krvnih grupa. Ovaj sistem je pod kontrolom jednog gena, koji ima dva alela. Mogu}a su tri genotipa, a svaki daje razli~itu krvnu grupu.
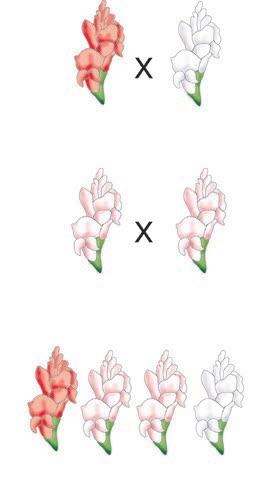
Nasle|ivawe boje cveta zevalice
Po{to su aleli kodominantni, homozigoti imaju M ili N krvnu grupu, a heterozigoti MN grupu. I kod ABO sistema (o kome ste u~ili ranije) aleli IA i IB su kodominantni – kada se na|u zajedno daju AB krvnu grupu.
^esta je pojava da gen ima vi{e od dva razli~ita oblika. ABO sistem krvnih grupa otkriven je po~etkom XX veka, a ne{to kasnije otkrivena je i wegova geneti~ka osnova. Sistem je pod kontrolom jednog gena, koji ima tri alela. Obi~no ih ozna~avamo sa IA, IB, i. Prva dva su potpuno dominantna u odnosu na tre}i, ali su me|usobno kodominantni. To zna~i da postoji {est mogu}ih genotipova, a ~etiri fenotipa, odnosno ~etiri krvne grupe – A, B, AB i O
Genotip Antigen Krvna grupa
IA IA, IA iAA
IB IB, IB iBB
IA IB A i B AB ii – O
Neki geni imaju i znatno ve}i broj alela. Na primer, gen za boju o~iju kod vo}ne mu{ice, pored alela koji daje uobi~ajenu crvenu boju, ima i alel za belu boju, kao i nekoliko desetina drugih alela koji daju razli~ite nijanse `ute, naranxaste i ru`i~aste.
Kod velikog broja osobina geneti~ka osnova nije jednostavna i ne postoji jednostavan odnos izme|u genotipa i odre|enog fenotipa. Osobine kao {to su visina, te`ina i sl. nemaju alternativne, jasno odvojene oblike. One mogu da se predstave na kvantitativnoj skali i nazivaju se kvantitativne osobine
Umesto alternativnih vrednosti, takve osobine pokazuju kontinuiranu raspodelu – niz vrednosti ~ija se zastupqenost u populaciji mo`e predstaviti zvonastom krivom. Najve}i broj jedinki ima sredwe vrednosti osobine, dok ekstremne vrednosti pokazuje sasvim mali broj jedinki. Ove osobine odre|ene su sa vi{e gena (tj. poligene su) i na wihovo varirawe u velikom stepenu uti~e sredina. Tako, na primer, na veli~inu i te`inu tela, pored geneti~ke predispozicije, uti~e ishrana, a na varirawe ~itavog niza osobina biqaka uti~u svetlost, vlaga, sastav zemqi{ta. U po~etku, geneti~ari su postavqali pitawe da li su kvantitativne osobine uop{te nasledne i, ako jesu, po kojim pravilima se prenose. Ubrzo su pokazali da se kontinuirana varijabilnost javqa kada osobinu odre|uje nekoliko gena s mawim pojedina~nim efektima, koji se pona{aju po Mendelovim pravilima. Jedan od prvih dokaza izveden je na primeru boje zrna p{enice. Postojale su linije s razli~itim nijansama boje zrna – od bele do tamnocrvene. Ukr{tawe jedinki s ekstremnim vrednostima osobine (bele i tamnocrvene) dalo je F1 potomstvo „sredwe” boje, a u F2 generaciji pojavilo se ~ak sedam fenotipskih klasa razli~itih nijansi. U~estalosti tih klasa pokazale su da datu osobinu – boju zrna –odre|uju tri gena sa po dva alela.
Neke osobine, kao {to su visina i te`ina, nemaju alternativne, jasno odvojene oblike.
Po{to su mnoge osobine pod poligenom kontrolom, gde su prisutni razli~iti uticaji, jedno od najva`nijih pitawa jeste uloga nasle|a i sredine u odre|ivawu tih osobina. U kojoj se meri varirawe osobine mo`e objasniti geneti~kim varirawem (tj. geneti~kim razlikama me|u jedinkama), a u kojoj sredinskim (razlikama u sredini)? Ovde ne postoji jednostavan odnos genotip–fenotip kao u nekim ranijim primerima koje smo prou~avali, pa geneti~ari primewuju druga~iji pristup. Posebnim tehnikama mo`e se odrediti ukupna fenotipska varijabilnost neke osobine u populaciji i proceniti koji je deo te varijabilnosti uzrokovan geneti~kim, a koji sredinskim ~iniocima.
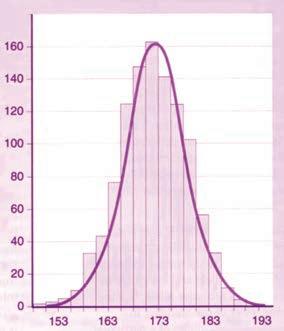
Raspodela vrednosti visine u uzorku od 1 000 odraslih osoba – sredwe vrednosti osobine su najzastupqenije.
Hromozomi su otkriveni jo{ u XIX veku (naziv zna~i obojeno telo). Iako Mendel nije znao gde se ta~no nalaze nasledne jedinice, drugi nau~nici su primetili podudarnost izme|u pona{awa gena uo~enog u eksperimentima s nasle|ivawem i pona{awa hromozoma tokom }elijske deobe i oplo|ewa. (U~ili ste o kretawu hromozoma tokom }elijske deobe.) Prisustvo dva alela, po jednog od svakog roditeqa, odgovaralo je prisustvu hromozoma poreklom od oca i majke, a odvajawe alela tokom formirawa gameta poklapalo se s odvajawem hromozoma koji odlaze u razli~ite gamete.
Jedan od kqu~nih koraka u razvoju genetike napravqen je po~etkom XX veka, kada su nau~nici utvrdili da se geni nalaze na hromozomima. To je postalo poznato kao hromozomska teorija nasle|ivawa. Mesto gena na hromozomu nazvano je lokus (lat. locus – mesto).
Hromozom prokariota je kru`nog oblika, dok eukarioti imaju vi{e linearnih hromozoma.(Podsetite se gra|e hromozoma.) Eukariotski hromozomi najboqe se vide prilikom deobe, kada su u vrlo spiralizovanom i kondenzovanom stawu. Hromozomi se razlikuju po veli~ini i obliku, odnosno polo`aju centromere (primarnog su`ewa), koja mo`e da bude na sredini, bli`e kraju ili na samom kraju hromozoma.
Broj hromozoma je karakteristi~an za vrstu.
Mo`e ih biti od svega nekoliko do vi{e stotina, a kod nekih paprati i vi{e od hiqadu Tako, na primer, pas ima 78 hromozoma, ma~ka 38, vo}na mu{ica 8, {aran 104, a gra{ak 14. ^ovek ima 46 hromozoma. (U nekim slu~ajevima razli~ite vrste imaju isti broj hromozoma, kao gorila i {impanza – 48.) Ve}ina eukariota ima diploidan( 2 n) broj hromozoma u svojim somatskim }elijama (kod ~oveka je taj broj 46), a u gametima upola mawi – haploidan (n) broj. Skup hromozoma u }eliji naziva se kariotip. Neki od tih hromozoma izgledaju isto. To su homologi hromozomi i oni se (u diploidnim
Tek polovinom XX veka je utvr|eno da je broj hromozoma kod ~oveka 46 (pre toga se dugo pogre{no mislilo da je 48), i to 22 para autozoma i 1 par polnih hromozoma – XX ili XY
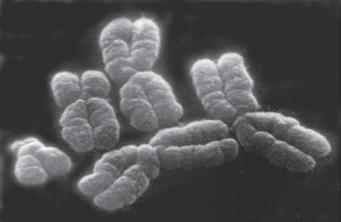
Izgled hromozoma
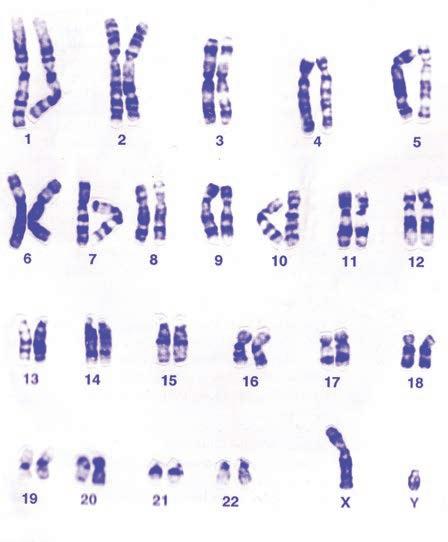
Kariotip ~oveka – hromozomi su pore|ani po veli~ini i ozna~eni brojevima.
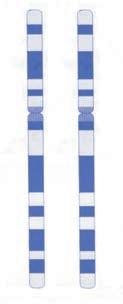
Homologi hromozomi
}elijama) nalaze u parovima. Homologi hromozomi su isti po du`ini i polo`aju centromere, imaju isti redosled genskih lokusa i sparuju se me|usobno tokom mejoti~ke deobe.
Ranije je bilo te{ko razlikovati hromozome, pa je usavr{eno vi{e tehnika bojewa koje su to olak{ale. Sada je mogu}e da se pojedina~ni hromozomi i wihovi delovi oboje razli~itim bojama i tako pouzdano prepoznaju. To umnogome olak{ava analizu, {to je naro~ito va`no kada su u pitawu bolesti povezane sa slo`enim promenama na hromozomima.
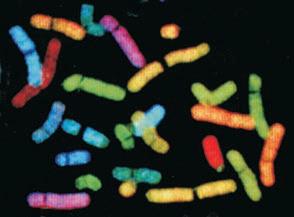
Definitivne dokaze za hromozomsku teoriju nasle|ivawa dao je geneti~ar Tomas Morgan (i za to dobio Nobelovu nagradu). On je utvrdio da postoji veza izme|u odre|enih gena i hromozoma, izvode}i brojne eksperimente na vo}noj mu{ici.
Veliki deo istra`ivawa u genetici, naro~ito u prvim fazama wenog razvoja, obavqen je na vo}noj mu{ici (Drosophila melanogaster). Ova vrsta je vrlo pogodna za rad jer ima kratko vreme generacije, veliki broj potomaka i lako se gaji u laboratoriji.
Hromozomi mogu da se oboje razli~itim bojama.
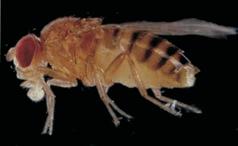
Vo}na mu{ica
Nasle|ivawe vezano za pol otkriveno je kada su neki eksperimenti dali neo~ekivane rezultate, odnosno neo~ekivanu zastupqenost osobina u potomstvu. U jednom od najpoznatijih eksperimenata Morgan je ukr{tao mu{ice s razli~itom bojom o~iju – uobi~ajenom crvenom i belom. Crvena boja je bila dominantna u odnosu na belu, tako da je on u potomstvu o~ekivao klasi~an odnos – da svi F1 potomci imaju crvene o~i, a F2 potomci crvene i bele u odnosu 3 : 1.
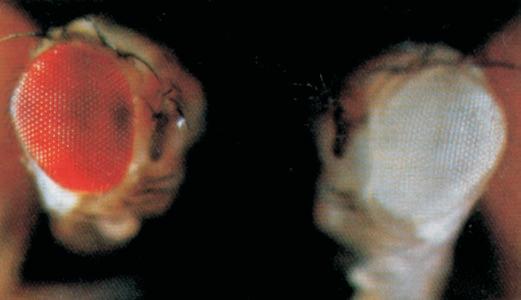
Me|utim, rezultati su pokazali o~igledna odstupawa. Proporcije razli~itih fenotipova zavisile su od pola roditeqa s odre|enom bojom o~iju: nije bilo svejedno da li je mu`jak imao bele o~i, a `enka crvene, ili obrnuto. Iz toga sledi da je nasle|ivawe bele boje o~iju vezano za pol, odnosno zavisi od toga koji roditeq nosi promeweni alel.
Morgan je ovu ~iwenicu objasnio postojawem polnih hromozoma. To su hromozomi koji su ukqu~eni u odre|ivawe pola (ostali se nazivaju autozomi) i obi~no se ozna~avaju kao X i Y Kod vo}ne mu{ice, kao i kod sisara, mu{ki pol ima par razli~itih polnih hromozoma – X i Y, dok `enski pol ima dva ista, X-hromozoma. Zato `enski pol daje samo gamete sa X-hromozomom, a mu{ki – deo gameta sa X, a deo sa Y-hromozomom.
Kod nekih grupa, kao {to su ptice i leptiri, situacija je obrnuta: `enke imaju razli~ite polne hromozome, a mu`jaci iste.
Hromozom Y veoma se razlikuje od svog „para”, X -hromozoma: znatno je mawi, sadr`i mali broj gena i pokazuje samo male sli~nosti u redosledu nukleotida. Po{to ge ni na X- hromozomu nemaju odgovaraju}e parwake na Y-hromozomu (osim nekoliko izuzetaka), oni pokazuju speci fi~an na~in nasle|ivawa. Recesivni alel na X-hromozomu ispoqava se kod mu{kog pola. U navedenom primeru za boju o~iju, mu`jaci koji su nasledili recesivni alel za belu boju imali su bele o~i. @enke koje su, tako|e, nasledile samo jedan recesivni alel imale su crvene o~i, usled prisustva drugog, dominantnog alela. X vezane osobine nikada se ne prenose po mu{koj liniji, tj. sa oca na sina, dok se malobrojne Y vezane osobine prenose samo sa oca na sina.
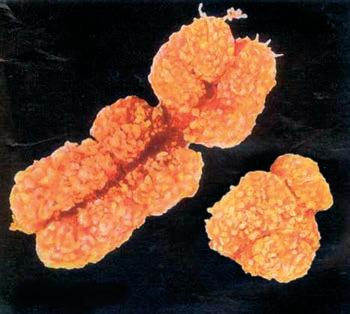
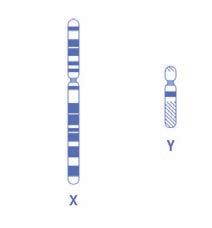
Polni hromozomi ~oveka
Hromozomska teorija nasle|ivawa objasnila je nezavisno kombinovawe osobina uo~eno u prvim eksperimentima. Re~ je o genima koji se nalaze na razli~itim, nehomologim hromozomima. Me|utim, veliki broj gena nalazi se na istom hromozomu. Takvi geni se ne pona{aju nezavisno, ve} se nasle|uju zajedno. Drugim re~ima, neke osobine }e se nasle|ivati vezano zato {to se geni koji ih odre|uju nalaze na istom hromozomu. Ipak, i takve osobine se mogu razdvojiti. To se pokazalo jo{ prilikom prvih eksperimenata na mu{icama. U jednom od eksperimenata istra`iva~i su pratili dve osobine odre|ene genima koji se nalaze na istom hromozomu: boju o~iju i veli~inu krila (crvene o~i su dominantne u odnosu na bele, normalna krila u odnosu na minijaturna). Roditeqi su imali crvene o~i i normalna krila ili bele o~i i minijaturna krila. Me|utim, u potomstvu su se, pored roditeqskih fenotipova, pojavili i novi. Jedan broj potomaka imao je kombinacije alela kojih nije bilo kod roditeqa: crvene o~i i minijaturna krila, odnosno bele o~i i normalna krila. Kako je do{lo do toga?
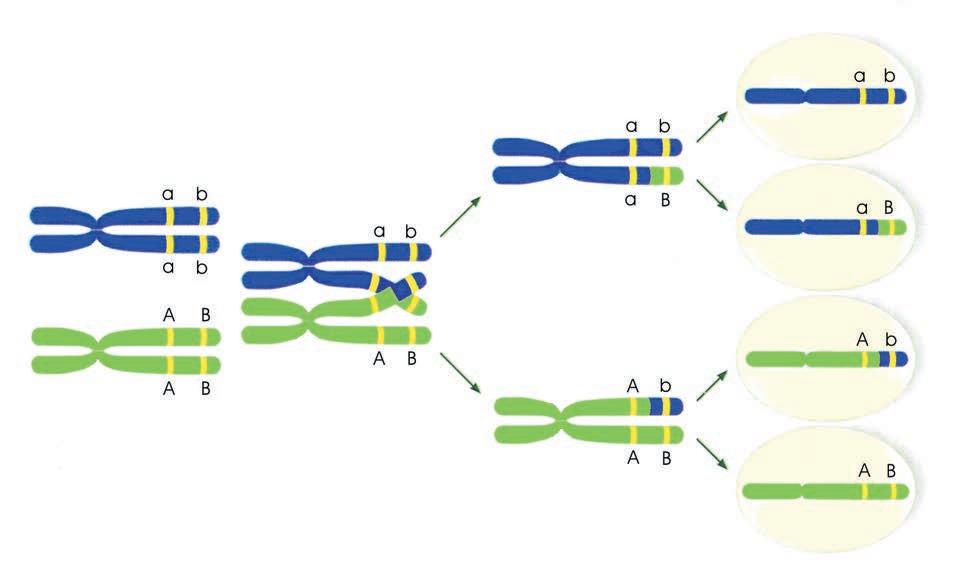
Razmena delova homologih hromozoma dovodi do razdvajawa vezanih gena i pojave novih kombinacija alela, kojih nije bilo u roditeqskoj generaciji.
Homologi hromozomi razmewuju delove tokom mejoze. (O tome je bilo re~i ranije.) Kao posledica te razmene, vezani geni mogu da se razdvoje i da se na|u u potomstvu u novim kombinacijama, koje se razlikuju od roditeqskih. Zato se taj proces naziva rekombinacija. Dakle, geneti~ka rekombinacija je proces koji dovodi do pojave novih kombinacija alela na razli~itim genskim lokusima, kojih nije bilo u roditeqskoj generaciji.
Po{to je u~estalost pojave novih kombinacija bila razli~ita za razli~ite parove osobina, Morgan je zakqu~io da su geni pore|ani du` hromozoma i da verovatno}a razdvajawa, odnosno rekombinacije zavisi od toga koliko su udaqeni jedan od drugoga. [to je ve}a
udaqenost izme|u dva gena, ve}a je i verovatno}a da }e do}i do rekombinacije izme|u wih. To je postavilo osnovu za tehniku geneti~kog mapirawa, odnosno za pravqewe hromozomskih mapa koje pokazuju raspored i relativan polo`aj gena na hromozomima.
Razmena delova hromozoma obezbe|uje veliki potencijal za geneti~ku varijabilnost (veliki broj razli~itih kombinacija) u gametima svake jedinke. Rekombinacije i nezavisno kombinovawe omogu}uju da potomci imaju razli~ite me{avine maj~inih i o~evih alela.
Rekombinacija je do sada posmatrana u svetlu doga|aja tokom mejoze. Me|utim, pod rekombinacijom uop{te podrazumeva se geneti~ka razmena izme|u dva molekula DNK, bilo da je re~ o eukariotskim homologim hromozomima, bilo o bakterijskim hromozomima. Ta razmena se zasniva na procesima prekidawa i ponovnog spajawa lanaca DNK. Ovi procesi su kqu~ni za novu tehnologiju ~ijom primenom se mogu dobiti rekombinantni DNK molekuli kakvih nema u prirodi – spajawem materijala iz razli~itih biolo{kih izvora. (O primenama tehnologije rekombinantne DNK bilo je re~i u uvodnom delu.)
Mutacija je nasledna promena geneti~ke informacije (lat. mutatio – promena). Od samih po~etaka genetike mutacije se intenzivno prou~avaju na pogodnim organizmima, koji imaju relativno kratke `ivotne cikluse (bakterije, vo}na mu{ica, neke biqke, mi{evi) i kod kojih mogu lako da se izazovu i prate.
Mutacije mogu da se klasifikuju na razli~ite na~ine – u zavisnosti od toga gde su se promene odvijale (koji deo geneti~kog materijala zahvataju), u kom tipu }elija, {ta ih izaziva, kakav im je efekat i sl.
Pod mutacijama se podrazumevaju promene i na nivou gena i na nivou hromozoma, koje mogu da budu jednostavne ili slo`ene. Recimo, u okviru gena mo`e da do|e do zamene ili gubitka (odnosno dobitka) samo jednog nukleotida, ili do slo`enijih promena koje zahvataju ve}i broj nukleotida. (Da biste boqe razumeli mutacije i wihove posledice, pro~itajte o prirodi geneti~ke informacije, odnosno o geneti~koj {ifri – kodu, u odgovaraju}em poglavqu Molekularne biologije.)
Ako se razmatraju efekti mutacija kod vi{e}elijskih organizama veoma je va`no da li je do promene do{lo u somatskim }elijama ili u gametima. Mutacije u gametima prenose se na slede}u generaciju. Mutacije u somatskim }elijama imaju uticaja na nosioca mutacije, ali se ne prenose na slede}u generaciju. Lak{e se uo~avaju ako su dominantne i ako se de{avaju ranije u razvi}u (ispoqi}e se u ve}em broju }elija). Naro~ito su bitne one somatske mutacije koje su povezane s pojavom kancera.
Sve mutacije imaju uzrok, ali se obi~no pravi razlika izme|u spontanih i indukovanih. Spontane mutacije su one koje se de{avaju nezavisno od nekog spoqa{weg faktora, odnosno nijedan specifi~ni mutagen (faktor koji uzrokuje mutacije) nije povezan s wihovom pojavom. One su rezultat spontanih doga|aja, slu~ajnih gre{aka tokom replikacije geneti~kog materijala. Po{to ovaj proces nije savr{en, uvek mo`e da do|e do gre{ke – ugradwe premalo ili previ{e baza, pogre{nog sparivawa baza i sl. Ako se gre{ka ne ispravi, mo`e da se odrazi na promenu strukture i funkcije odre|enog proteina.
Nasuprot ovak vim spontanim doga|ajima, mutacije koje su izazvane delovawem nekog specifi~nog faktora nazivaju se indukovanim. Prvi put su mutacije ve{ta~ki izazvane X-zracima kod vo}ne mu{ice. O~igledno je da se ove dve kategorije mutacija ne mogu jasno razgrani~iti i da
Neke mutacije su upadqive na prvi pogled.
postoji preklapawe. Niz prirodnih fenomena tako|e mo`e da uti~e na hemijske procese u }elijama i da indukuje mutacije (npr. UV zra~ewe Sunca).
Mutacije se klasifikuju i na osnovu fenotipskih efekata – mogu da budu mawe ili vi{e uo~qive i da imaju razli~ite posledice po svoje nosioce. Neke mutacije su upadqive na prvi pogled, recimo bela boja o~iju kod mu{ica ili albinizam (nedostatak tamnog pigmenta) kod sisara. Po svom uticaju na nosioce, mogu da budu {tetne, korisne ili neutralne. Mutacije koje kao posledicu imaju smrt nazivaju se letalne mutacije (letalis – smrtonosan). One poga|aju gene ~iji su proizvodi neophodni za pre`ivqavawe i funkcionisawe organizma.
Molekuli DNK su podlo`ni promenama i o{te}ewima koja mogu da dovedu do mutacija. Uzroci tih promena, kao {to je ve} re~eno, mogu da budu razli~iti – hemikalije, zra~ewa, slu~ajne gre{ke tokom udvajawa geneti~kog materijala. Me|utim, mnoge od tih gre{aka se na vreme isprave (npr. isecawem o{te}enog dela i wegovom zamenom) delovawem nekog od brojnih mehanizama za popravku geneti~kih o{te}ewa („reper” mehanizmi).
Genske mutacije mogu da zahvate mawe ili ve}e delove gena. Ta~kaste mutacije zahvataju jednu ili nekoliko baza, pri ~emu mo`e do}i do zamene, ubacivawa ili izbacivawa baze. Mnoge ta~kaste mutacije su tzv. mutacije pogre{nog smisla – mewaju smisao poruke jer promena baze mewa kodon, tako da se na odre|eno mesto ugradi pogre{na amino-kiselina.
Bolest srpasta anemija posledica je jedne takve promene. Oboqewe je pra}eno te{kim oblikom malokrvnosti i unutra{wim krvarewima zbog toga {to crvena krvna zrnca imaju deformisan, srpast oblik. Uzrok tome je promewena gra|a hemoglobina, a normalni i promeweni hemoglobin razlikuju se u samo jednoj amino-kiselini (str. 93).
Naravno, nisu sve ovakve promene {tetne. Neke su i korisne jer mewaju proizvode gena na takav na~in da omogu}uju boqe pre`ivqavawe ili reprodukciju. Postoje i mutacije koje se ne mogu otkriti na uobi~ajen na~in – nemaju merqiv fenotipski efekat, tj. ne mewaju proizvod ili aktivnost gena. Promena baze nema uvek kao posledicu promenu amino-kiseline. To su tzv. tihe mutacije.
Pored zamene, mo`e se pojaviti i mawak ili vi{ak nukleotida. Po{to se ~itaju tri po tri nukleotida, ovakve mutacije mewaju smisao geneti~ke poruke od tog mesta pa nadaqe jer pomeraju okvir ~itawa. Zamislite re~enicu sastavqenu od troslovnih re~i, na primer: PAS IDE NIZ PUT. [ta }e biti s informacijom ako se negde u woj pojavi slovo vi{ka ili mawka, recimo: PAS IDD ENI ZPU T ili PSI DEN IZP UT?
Jedna grupa mutacija nastaje tako {to se neki tripleti nukleotida (npr. CAG) javqaju u velikom broju kopija. Naime, pojedini tripleti postoje u vi{e kopija i u normalnim alelima, a u promewenim alelima taj broj je uve}an i mo`e iznositi i vi{e stotina. Ovakve mutacije su uzrok nekih te{kih naslednih poreme}aja kod qudi, kao {to je Hantingtonova bolest, neurodegenerativno oboqewe koje se zavr{ava smr}u ili „lomqivi“ X-hromozom, koji predstavqa jedan od ~estih uzroka mentalne zaostalosti.
Hromozomske promene mogu da budu promene u strukturi ili u broju. Do promena u strukturi dolazi usled pojave prekida u hromozomima i pogre{nog spajawa prekinutih krajeva, a do promena u broju – usled nepravilnog razdvajawa hromozoma tokom deobe.
Kada se neki deo hromozoma pojavi u dve ili vi{e kopija, to se naziva duplikacija, a kada nedostaje, re~ je o deleciji (lat. deleo, delere – uni{titi, izbrisati). Inverzije su promene redosleda gena na hromozomu (lat. inversio – obrnut red). Mogu zahvatiti razli~ite delove hromozoma: neke zahvataju centromeru, a neke je ne zahvataju. Translokacija je prebacivawe dela hromozoma na drugi, nehomologi hromozom.
Posledice navedenih promena su razli~ite. Obi~no delecije imaju {tetnije efekte, koji mogu da budu i letalni. Za duplikacije se smatra da su imale va`nu (i pozitivnu) ulogu u evoluciji. Dok su kod ~oveka inverzije i translokacije uglavnom poduplikacija delecija inverzija translokacija
vezane s negativnim posledicama, neke biqne i `ivotiwske vrste normalno poseduju razli~ite tipove translokacija ili inverzija u svojim populacijama.
Promene u broju hromozoma mogu da budu promene u broju ~itavih hromozomskih setova ili u broju pojedina~nih hromozoma.
Poliploidija je prisustvo vi{e od dva kompletna seta hromozoma. Poznato je da se haploidan broj hromozoma ozna~ava sa n, a diploidan sa 2n. Organizmi sa tri seta hromozoma su triploidi (3n), sa ~etiri tetraploidi (4n) itd. Do ove pojave mo`e do}i pri ukr{tawu roditeqa koji pripadaju istoj ili razli~itim vrstama.
Poliploidija je retka kod `ivotiwa (sre}e se kod nekih vrsta beski~mewaka, vodozemaca i riba). Kod biqaka je, naprotiv, ~esta i ima va`nu ulogu u nastanku novih vrsta. Poliploidi su ~esto krupniji i daju ve}e plodove od srodnih diploida. Mnoge biqke koje se gaje da bi se koristile kao hrana su poliploidi, recimo krompir (4n =48), p{enica (6n =42) ili jagode (8n =56).
Promena broja pojedina~nih hromozoma naziva se aneuploidija. Do pojave vi{ka ili mawka hromozoma dolazi kada se dva homologa hromozoma ne razdvoje pravilno tokom deobe i formirawa gameta, pa neki gameti nose dva, a neki nemaju nijedan primerak tog hromozoma. Kada se takvi gameti spoje s normalnim, hromozom }e se, umesto u dva primerka, pojaviti u tri ({to se naziva trizomija) ili samo u jednom (monozomija).
Pojava trizomije utvr|ena je kod velikog broja vrsta. Kod mnogih biqaka, nosioci trizomija su vijabilni (sposobni da pre`ive), dok kod `ivotiwa vrlo ~esto nisu. Kod qudi, analiza spontanih poba~aja pokazala je da su skoro sve monozomije i mnoge trizomije letalne (vi{e o tome na str. 75).
Oblik ploda tatule – vi{ak bilo kog od wenih hromozoma dovodi do promene oblika (dowi red: oblik ploda kod razli~itih trizomija).
Poznat je primer razli~itih trizomija kod biqke tatule (Datura): bilo koji od wenih 12 hromozoma mo`e da se pojavi u tri primerka, {to ne uti~e na pre`ivqavawe, ali dovodi do upadqivih razlika u obliku ploda.
Koliko se ~esto mutacije de{avaju? Kod vi{e}elijskih organizama u~estalost mutacija u odre|enom genu izra`ava se prema broju gameta (a to je broj jedinki u populaciji puta dva jer je svaka jedinka nastala spajawem dva gameta). Broj mutacija odre|enog gena koje se pojave po
gametu po generaciji naziva se stopa mutacija. Ona je veoma razli~ita kod razli~itih organizama, a i u okviru iste vrste razlikuje se od gena do gena: neki geni mutiraju ~e{}e od drugih.
Tako, na primer, geni bakterija podle`u spontanim mutacijama prose~no jednom u 100 000 000 }elijskih deoba. U genima vo}ne mu{ice, kukuruza ili ~oveka mutacije se javqaju prose~no jednom na milion ili jednom na 100 000 gameta. Kod nekih organizama i nekih gena mutacije mogu biti i znatno ~e{}e.
Koliko mi nosimo {tetnih mutacija? U~estalost pojave mutacija u ~itavom genomu je pitawe od velikog zna~aja, naro~ito ako je re~ o {tetnim mutacijama i o na{em sopstvenom genomu. Neke od novijih procena su da ta brojka iznosi najmawe 1,6 {tetnih mutacija po osobi.
Mutacije se de{avaju mnogo ~e{}e ukoliko su prisutni sredinski agensi, kao {to su razli~ite vrste zra~ewa i hemijskih materija.
U svakodnevnom `ivotu veliki broj hemikalija dolazi u dodir s qudskim telom (preko ko`e, sistema za disawe, sistema za varewe) i veoma je va`no da se ispita da li one imaju mutageni efekat. Posebna pa`wa poklawa se materijama koje zaga|uju vazduh i vodu, hrani kojoj se dodaju razni konzervansi, boje i aditivi, lekovima, sredstvima koja se koriste u poqoprivredi (herbicidi, insekticidi i sl.).
Razli~ite hemikalije izazivaju razne vrste o{te}ewa DNK – recimo, dovode do ugradwe pogre{nog nukleotida ili mewaju okvir ~itawa. Mutagenost mo`e da se testira na razli~itim organizmima, a jedan od naj~e{}ih testova koristi posebno odabrane sojeve bakterija.
Razli~ite vrste zra~ewa tako|e izazivaju mutacije. Tipovi zra~ewa se razlikuju po energiji: {to je mawa talasna du`ina, energija je ve}a. Ultraqubi~asta (UV) komponenta Sun~evog zra~ewa ima veliki biolo{ki zna~aj jer mo`e da izazove o{te}ewa DNK. Ovi zraci obi~no dovode do povezivawa susednih baza na istom lancu, a to mewa prostornu organizaciju i ometa replikaciju DNK.
Ozonski omota~ oko Zemqe apsorbuje najve}i deo tog zra~ewa, koje je povezano sa o{te}ewem DNK u }elijama ko`e i rakom ko`e. Zato je stawe tog za{titnog sloja (o{te}ewa, odnosno „rupe”) za nas od velike va`nosti.
Gama i X-zraci, koji imaju mnogo mawe talasne du`ine, odlikuju se znatno ve}om energijom. Mogu da prodru duboko u
Ozonski omota~ – tamna boja ozna~ava delove gde je sloj ozona najtawi.
tkiva, deluju}i direktno ili indirektno na geneti~ki materijal. Najve}a o{te}ewa izazivaju tako {to jonizuju okolne molekule, naro~ito molekule vode, formiraju}i vrlo reaktivne jone i slobodne radikale, koji potom deluju na DNK. Jonizuju}a zra~ewa mogu da mewaju baze i izazivaju ta~kaste mutacije, ili da kidawem vezâ dovedu do prekida u jednom ili oba lanca DNK. (Dvolan~ani prekidi se mnogo te`e popravqaju od jednolan~anih.)
^ak i male doze zra~ewa mogu da budu mutagene. Eksperimenti na vo}nim mu{icama su pokazali da postoji linearan odnos izme|u primewene doze zra~ewa i procenta izazvanih letalnih mutacija: udvostru~ewe doze udvostru~ilo je i broj novonastalih mutacija. Efekat zra~ewa zavisi i od faze }elijskog ciklusa – }elije u deobi su osetqivije jer su hromozomi kondenzovani. Mnogi mutageni su i kancerogeni.
U svakom trenutku neke od }elija na{eg tela se dele, zamewuju}i istro{ene prethodnike. Ta deoba je strogo kontrolisana. Me|utim, u nekim slu~ajevima mo`e do}i do gubitka kontrole: }elija se transformi{e, promeni i prolazi kroz ponovqene deobe. Tako nastaje kancer. ]elije kancera rastu, dele se nekontrolisano i sti~u sposobnost da prelaze u druga tkiva. Ovaj problem nije specifi~an za ~oveka, ve} se javqa i kod drugih vrsta. Re~ je o slo`enoj grupi oboqewa u ~ijoj se osnovi nalaze geneti~ki poreme}aji kao {to su mutacije nekog od genâ va`nih za kontrolu procesa deobe ili }elijske smrti. Poznato je da promene u odre|enim genima dovode do pojave kancera. Mutirani geni koji imaju sposobnost da indukuju kancer nazivaju se onkogeni. Druga grupa gena ima ulogu da reguli{e proces }elijske deobe u smislu supresije (zaustavqawa, blokirawa), pa se nazivaju tumor supresori. Mutacije tih gena dovode do aktivacije deobe, nekontrolisane proliferacije }elija i pojave tumora. Tako su, na primer, mutacije gena nazvanog p53 prisutne u različitim tipovima tumora, dok određene mutacije gena BRCA1 i BRCA2 značajno povećavaju rizik od pojave naslednog karcinoma dojke i jajnika.
[ta dovodi do mutacije tih kriti~nih gena? To mo`e da bude posledica promena u gra|i hromozoma, kao {to su delecije i translokacije, ili genskih mutacija, kao {to su zamene ili gubitak nukleotida. Znatan uticaj imaju i mutageni koji mewaju strukturu DNK. Na primer, UV i X-zraci su mutageni, a tako|e i niz prirodnih i ve{ta~kih supstanci, recimo azbest, komponente duvanskog dima i sl.
]elije kancera – u centru se vidi }elija u deobi.
Populaciona genetika prou~ava geneti~ku varijabilnost u populacijama: kako se razli~ite geneti~ke varijante pojavquju, kako i za{to se neke od wih odr`avaju, dok druge vremenom nestaju, koji procesi uti~u na geneti~ku strukturu populacija i kako se ona mewa kroz generacije.
Vrste `ivih bi}a sastoje se od populacija. Neke vrste imaju samo po jednu populaciju, ali ve}ina ih ima vi{e. Populaciju ~ine jedinke iste vrste koje `ive na odre|enom podru~ju u isto vreme. (U nekim slu~ajevima granice populacija se mogu sasvim jasno odrediti, kao kada naseqavaju razli~ita ostrva, ali to nije uvek tako.) Mnoge populacije su u me|usobnom kontaktu – `ivotiwe mogu da prelaze iz jedne populacije u drugu, polen ili seme biqaka tako|e. Jedinke unutar populacije razlikuju se po mnogim osobinama, a nama je ovde va`an onaj deo te varijabilnosti koji je nasledan.
Jedinke jedne populacije nisu istovetne u geneti~kom pogledu. U populacijama je prisutna geneti~ka varijabilnost, tj. razli~ite geneti~ke varijante. To mogu da budu aleli odre|enog gena ili hromozomske varijante, kao {to su razli~iti tipovi inverzija ili translokacija. Tako u qudskim populacijama postoje razli~iti aleli za krvne grupe, a u populacijama mnogih vrsta insekata razli~ite hromozomske varijante.
Kako mo`emo da procenimo geneti~ku varijabilnost u populacijama? Najjednostavnije je da uo~imo varijabilnost u spoqa{wem izgledu. Individualnu varijabilnost uo~avamo lako kada posmatramo bilo koju vrstu, po~ev od na{e sopstvene, gde postoje upadqive razlike u boji kose, o~iju, ko`e, u visini i sl. Isto va`i i za druge organizme. Ima mnogo primera da boja i {are variraju, ~ak i znatno, u populacijama ptica, leptira, pu`eva ... Naravno, ne mo`emo na prvi pogled utvrditi koliko je od te morfolo{ke varijabilnosti nasledno. Jedan od prvih zadataka nau~nika koji su se bavili varijabilno{}u u populacijama bio je da otkriju geneti~ke razlike koje le`e u osnovi morfolo{kih razlika.
Pokazalo se da u prirodi postoji mnogo vi{e geneti~ke varijabilnosti nego {to mo`e da se otkrije pukim posmatrawem. To je utvr|eno primenom ve}eg broja razli~itih metoda – od selekcionih eksperimenata, do najsavremenijih molekularno-geneti~kih metoda koje otkrivaju i sasvim male promene u strukturi DNK.
Varijabilnost u spoqa{wem izgledu se najlak{e uo~ava.
Savremenim metodama mogu se analizirati razlike u gra|i proteina, kao i nukleinskih kiselina. Na primer, DNK mo`e da se ise~e „molekularnim makazama” (postoje enzimi koji imaju takvu ulogu) na delove razli~itih du`ina. Wihova du`ina zavisi od toga gde se nalaze odgovaraju}a „mesta za se~ewe”. Promene nukleotida mogu da dovedu do stvarawa ili nestanka mesta za se~ewe, tako da wihov polo`aj ne}e biti isti kod svih jedinki. Posledica }e biti razli~ita du`ina fragmenata. Ova vrsta varijabilnosti ~esta je u genomu ~oveka.
Najprecizniji podaci o veli~ini geneti~ke varijabilnosti dobijaju se metodom sekvencirawa DNK: utvr|ivawem redosleda nukleotida u DNK mogu se uo~iti i najmawe razlike u naslednom materijalu.
Navedene metode omogu}ile su da se proceni veli~ina geneti~ke varijabilnosti u populacijama velikog broja vrsta. To ima ogroman zna~aj u razli~itim oblastima – od osnovnih nau~nih istra`ivawa, do prakti~ne primene u svakodnevnom `ivotu.
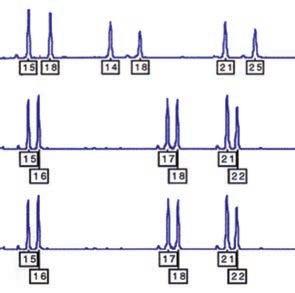
Savremena automatizovana analiza ovako prikazuje DNK otiske.
DNK otisci – dva od ovih pet uzoraka pripadaju istoj osobi.
Postojawe geneti~kih varijanata, kao {to su prisustvo ili odsustvo „mesta za se~ewe“ ili varijabilnost u du`ini ponovqivih DNK nizova, ima mnogobrojne prakti~ne primene u razli~itim oblastima – medicini, kriminalistici, poqoprivredi, konzervacionoj biologiji. Tehnika „DNK otisaka“ koristi se za identifikaciju osoba, recimo pri uvr|ivawu o~instva i u kriminalistici (DNK mo`e da se izoluje iz sasvim malih koli~ina tkiva sa mesta zlo~ina, kao {to su mrqe krvi, ili iz starog i delimi~no degradiranog materijala, kao {to je tkivo egipatskih mumija). Naziv „DNK otisak“ odnosi se na specifi~an raspored traka na gelu koje se dobijaju odgovaraju}om procedurom i dat je po analogiji sa otiscima prstiju. Uvek je isti za odre|enu osobu, bez obzira na to iz kog tkiva poti~e DNK, ali se razlikuje od osobe do osobe, kao i pravi otisci prstiju.
U~estalost razli~itih geneti~kih varijanata u nekoj populaciji ~ini wenu geneti~ku strukturu. U populacionoj genetici koriste se matemati~ki modeli koji opisuju tu strukturu i prate wene promene tokom vremena. Svaka populacija ima svoj genski fond – skup gena svih jedinki u populaciji.
Ako posmatramo jedan genski lokus koji u odre|enoj populaciji ima dva (ili vi{e) alela, primeti}emo da jedinke imaju razli~ite genotipove. Na osnovu jednostavnog modela mo`emo
izra~unati u~estalosti genotipova i alela i proceniti kolike }e biti u slede}im generacijama.
Problem je koliko biolo{ki, toliko i matemati~ki. Do re{ewa su prvi do{li (1908) engleski matemati~ar Hardi i nema~ki lekar Vajnberg i time postavili temeqe populacione
Ovaj princip }emo najboqe objasniti na jednom zami{qenom primeru. Prati}emo jedan gen koji ima dva alela – A i a. U tom slu~aju postoje tri genotipa: AA, Aa i aa. U jednoj populaciji ispitali smo genotipove 1 000 jedinki i dobili slede}e rezultate:
GenotipBrojU~estalost
U~estalost genotipa je proporcija tog genotipa u populaciji. Ovde je u~estalost genotipa AA = 640/1000 = 0,64. Zbir u~estalosti svih genotipova na datom lokusu je 1.
U~estalost alela je proporcija tog alela u populaciji. Svaka diploidna jedinka ima dva alela za dati gen. Oni mogu da budu isti ili razli~iti. Jedinke sa genotipom AA imaju po dva alela A, a jedinke sa genotipom Aa po jedan. Tako je u na{em primeru ukupan broj alela A: 2 h 640 + 320 = 1600, a wegova u~estalost 1600/2000 = 0,8. Na isti na~in izra~unava se i u~estalost alela a. Zbir u~estalosti svih alela na datom lokusu je 1.
U~estalosti alela obele`i}emo slovima p i q (u na{em primeru p = 0,8, a q = 0,2). [ta }e se dogoditi u narednoj generaciji, pokazuje slede}i model.
Neke jajne }elije (u ovom primeru 80% wih) nosi}e alel A, a ostale alel a. Isto va`i i za spermatozoide. Kada se gameti ukrste po principu slu~ajnosti, u~estalost genotipova AA, Aa i aa u potomstvu bi}e:
U~estalosti alela u `enskim gametima a A
U~estalosti alela
u mu{kim gametima
p (0,8) q (0,2)
AA
Aa
p (0,8)
q (0,2) A a
p2= 0,8 x 0,8 = 0,64
Aa
pq = 0,8 x 0,2 = 0,16
pq = 0,8 x 0,2 = 0,16
aa
q2 = 0,2 x 0,2 = 0,04
Dakle, u~estalosti genotipova, }e biti p2 (AA), 2 pq, (Aa) i q2 (aa). U na{em primeru to je 0,64; 0,32 i 0,04 – isto kao u prethodnoj generaciji.
Matemati~ki, te u~estalosti se mogu predstaviti na slede}i na~in:
p + q = 1
A a
(p + q)2 = 1
p2 + 2 pq + q2 = 1
AA Aa aa
genetike. Oni su pokazali da u~estalosti genotipova i alela u populaciji mogu da se opi{u matemati~ki i da proces nasle|ivawa sam po sebi ne mewa te u~estalosti. To je danas poznato kao Hardi–Vajnbergov princip. Pored toga, pokazali su i da dominantan alel ne mora obavezno da bude ~e{}i od recesivnog
Hardi–Vajnbergov princip pokazuje da relativne u~estalosti alela i genotipova kroz generacije ostaju nepromewene, {to se naziva geneti~ka ravnote`a. Drugim re~ima, proces nasle|ivawa sam po sebi ne mewa u~estalosti alela. Ako populacija nije bila u ravote`i za odre|eni gen, jedna generacija slu~ajnog ukr{tawa dovoqna je da dospe u ravnote`u i u woj ostane.
Pomenuti princip va`i pod odre|enim uslovima: da je populacija velika, da se jedinke ukr{taju slu~ajno (ne biraju se na osnovu genotipa), da se ne pojavquju novi aleli kao posledica mutacija ili migracija (prelaska jedinki iz jedne u drugu populaciju), kao i da ne deluje selekcija. Naravno, to je pojednostavqena situacija u odnosu na onu koja postoji u prirodi. U prirodnim populacijama odigravaju se mutacije, deluje selekcija i sl., {to dovodi do promena u~estalosti. Neke populacije su u ravnote`i za posmatrani gen, a neke nisu.
Ovaj osnovni, op{ti model omogu}ava nam da pratimo kako se geneti~ka ravnote`a odr`ava i kako razli~iti mehanizmi uti~u na promene u~estalosti alela i genotipova kada neka od navedenih pretpostavki nije ispuwena.
Jedan od primera za to je ukr{tawe u srodstvu. U populacijama povremeno dolazi do ukr{tawa jedinki koje su u bli`em srodstvu, tj. geneti~ki sli~nije u odnosu na prosek. Ekstremni slu~aj ukr{tawa u srodstvu je samooplodwa, koja je ~esta kod biqaka.
Ukr{tawe u srodstvu (bez delovawa drugih mehanizama) ne mewa u~estalosti alela, ali mewa u~estalosti genotipova. Javqa se vi{e homozigota, {to dovodi do ve}eg ispoqavawa recesivnih {tetnih mutacija. Kod qudi ima mnogo primera da je u izolovanim zajednicama, gde su brakovi u srodstvu ~esti, do{lo do zna~ajnog pove}awa u~estalosti recesivnih naslednih bolesti.
Principi populacione genetike imaju va`nu primenu kada je re~ o dobijawu novih varijeteta biqaka i `ivotiwa i izazivawu `eqenih promena u vrednosti osobina procesom ve{ta~ke selekcije. Tradicija gajewa biqaka i `ivotiwa stara je vi{e od deset hiqada godina. Ve} tada je do{lo do prvog ve{ta~kog odabirawa razli~itih geneti~kih varijanata, mada su se tehnike odabirawa sigurno razlikovale od dana{wih.
Pri ve{ta~koj selekciji za roditeqe slede}e generacije biraju se jedinke koje ispoqavaju `eqene vrednosti neke osobine (najve}e ili najmawe). Na primer, ako `elimo da pove}amo prinos p{enice, bira}emo u svakoj generaciji biqke koje su dale najve}u koli~inu zrna i samo one }e se daqe razmno`avati. Kao odgovor populacije na takvu selekciju, prose~na vrednost osobine u slede}oj generaciji pomeri}e se u `eqenom smeru. Promena vrednosti osobine kao odgovor na selekciju pokazuje da postoji geneti~ka varijabilnost za tu osobinu.
Ova procedura se rutinski koristi u poqoprivredi. Ve{ta~ka selekcija je uspe{no sprovedena za veliki broj osobina `itarica, industrijskih biqaka, goveda, sviwa, ovaca i `ivine. Tako je postignuto pove}awe prinosa, koli~ine mleka, kvaliteta mesa, prose~nog broja jaja i sl.
Ve{ta~ka selekcija se uspe{no primewuje i u mnogim drugim situacijama. U laboratorijskim uslovima, kod niza eksperimentalnih organizama, dobijeni su odgovori na selekciju za du`inu `ivota, razli~ite osobine pona{awa, rano ili kasno razmno`avawe itd.
^iwenica da je ve{ta~ka selekcija uspe{no sprovedena na ogromnom broju organizama i wihovih osobina govori o velikoj geneti~koj varijabilnosti `ivih bi}a. Darvin je bio impresioniran rezultatima koje su postigli odgajiva~i golubova i smatrao je to zna~ajnim dokazom promenqivosti vrsta.
Ima mnogo primera da ve{ta~ka selekcija mo`e vremenom da dovede do dramati~nih promena i da se mo`e sprovoditi i za razli~ite osobine i u razli~itim smerovima za istu osobinu. Tako su, jo{ davno, odgajiva~i dobili razli~ite varijetete pasa, golubova, ukrasnih biqaka, a sa jednim od najupe~atqivijih primera susre}emo se svakodnevno. Naime, kupus, karfiol i keleraba dobijeni su selekcijom od istog pretka, neugledne divqe biqke koju su qudi po~eli da gaje pre oko 4000 godina, odabiraju}i jedinke s posebnim osobinama –velikim listovima, mesnatim cvastima ili zadebqalom stabqikom.
Dana{wa raznovrsnost gajenih biqaka i `ivotiwa rezultat je dugotrajne primene ve{ta~ke selekcije, kao i hibridizacije – ukr{tawa geneti~ki razli~itih linija. Hibridizacija je imala zna~ajnu ulogu u dobijawu visokoproduktivnih linija kukuruza i pirin~a, osnovne hrane velikog broja qudi.
Ve}i prinosi u poqoprivredi, neophodni u uslovima dramati~nog porasta broja stanovnika na Zemqi, danas se posti`u primenom niza razli~itih metoda. Posebnu ulogu ima tehnologija rekombinantne DNK, koja omogu}uje nove i br`e geneti~ke promene kod gajenih vrsta ubacivawem u wihov genom odre|enih gena koji obezbe|uju otpornost prema bolestima, {teto~inama ili nepovoqnim uslovima sredine.
To dodatno skre}e pa`wu na zna~aj o~uvawa varijabilnosti i na divqe srodnike gajenih vrsta koji se mogu koristiti kao „rezervoar” korisnih gena. Jedan od najboqih primera je paradajz, kultivisan od divqe biqke iz Ju`ne Amerike i relativno kasno prenet u Evropu. U po~etku ga qudi nisu koristili u ishrani jer se mislilo da je otrovan, ali danas predstavqa jednu od najzna~ajnijih namirnica. Upravo zbog toga sve vi{e se radi na wegovim osobinama koje uti~u na pove}awe roda, kao {to su na~in sazrevawa i rasta i otpornost prema nepovoqnim uslovima. Presudnu ulogu u tome ima velika geneti~ka varijabilnost divqih srodnika paradajza, od kojih neki uspevaju i u veoma nepovoqnim uslovima, recimo na zaslawenom ili vrlo suvom zemqi{tu.
Geneti~ki modifikovani organizmi (GMO), dobijeni ubacivawem odre|enih gena iz drugog biolo{kog izvora, izazvali su veliku pa`wu javnosti (u SAD je, na primer, oko 40% pamuka, soje i kukuruza geneti~ki modifikovano). U vezi s tim postavqaju se pitawa da li je upotreba GMO bezbedna po qude i okolinu, kakva je opasnost od wihovog osloba|awa u sredinu i sli~no. To zahteva temeqna istra`ivawa, ali i informisawe javnosti u pogledu razli~itih aspekata ovog problema.
Konzervaciona genetika bavi se odr`avawem geneti~ke varijabilnosti razli~itih vrsta – od onih koje su komercijalno zna~ajne, do retkih i ugro`enih vrsta.
Smawewe geneti~ke varijabilnosti jedan je od najva`nijih problema s kojima se sre}emo. Na primer, pove}awe prinosa o kojem smo govorili ima i drugu stranu – smawewe ukupne varijabilnosti vrste i pove}awe osetqivosti na bolesti, parazite i sl. Na velikim povr{inama gaji se mali broj varijeteta, novi varijeteti potiskuju stare, doma}e (koji nose alele va`ne za prilago|avawe lokalnim uslovima). U geneti~ki jednoobraznim populacijama neko oboqewe ili {teto~ina mo`e da se pro{iri velikom brzinom i nanese ogromnu {tetu. Tako je pre nekoliko decenija u SAD do{lo do velikih gubitaka u proizvodwi kukuruza usled bolesti jer su velike povr{ine bile zasejane geneti~ki sli~nim linijama neotpornim na tu bolest.
Da bi se o~uvala varijabilnost, veoma je va`no da se nastavi s gajewem lokalnih varijeteta, da se stvaraju i ~uvaju zbirke semena kultivisanih biqaka i wihovih divqih srodnika.
Razli~iti ~inioci, kao {to su uni{tavawe stani{ta, preterano izlovqavawe i sli~no, doveli su do izumirawa niza vrsta, a mnoge su na listi ugro`enih. Na nekim mestima, recimo u slivu Amazona, ugro`eni su ~itavi ekosistemi, s velikim brojem vrsta. Za ugro`enu vrstu gubitak geneti~ke varijabilnosti predstavqa ozbiqan problem. U populacijama male brojnosti dolazi do pove}anog ukr{tawa u srodstvu, do ispoqavawa recesivnih {tetnih mutacija, a time i do smawewa adaptivne vrednosti. Vrsta tako postaje jo{ osetqivija i ugro`enija. Ovaj problem je uo~en i u programima za{tite, u zoolo{kim vrtovima, pri parewu u zato~eni{tvu. Zato se u novije vreme, da bi se izbegle ili smawile negativne posledice, prate rodoslovi tih `ivotiwa, tj. wihovi srodni~ki odnosi.
Jedna od ugro`enih vrsta vodozemaca
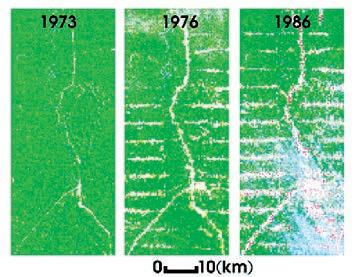
Pose~ena {uma u slivu Amazona
Qudsko telo sadr`i vi{e od dvesta razli~itih tipova }elija. Te }elije su organizovane u tkiva i grade slo`ene strukture kao {to su oko ili mozak. ^itav slo`eni organizam, sa svim svojim tkivima i organima, poti~e od jedne jedine }elije – oplo|ene jajne }elije.
Kako do toga dolazi? Svi vi{e}elijski organizmi imaju slo`ene obrasce razvi}a. Tokom velikog broja }elijskih deoba grupe }elija se postepeno mewaju i diferenciraju, kao rezultat aktivnosti odre|enih gena. Diferencirane }elije odlikuju se specifi~nim izgledom i funkcijom. Telo dobija oblik i strukturu. Kako od jedne loptaste forme nastaje ne{to {to ima predwi i zadwi kraj, le|nu i trbu{nu stranu? Do toga dolazi tako {to se }elije u odre|enim delovima embriona prostorno organizuju u prepoznatqive strukture. Ali kako }elija „zna” gde se nalazi? Signali koji dolaze iz okoline, kao {to je koncentracija odre|enog proteina, pokazuju wen ta~an polo`aj u embrionu.
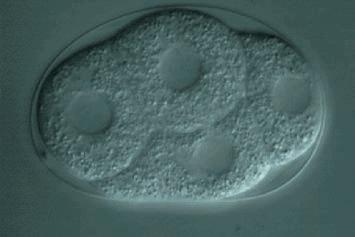
Oplo|ena jajna }elija ima sposobnost da dâ sve tipove }elija. U diferenciranim }elijama (koje tu sposobnost vi{e nemaju) postoji isti takav geneti~ki program, koji se mo`e ponovo aktivirati ve{ta~kim putem. Takva istra`ivawa su vrlo zna~ajna za medicinu jer je na{a sposobnost regeneracije o{te}enih tkiva prili~no ograni~ena. Re{ewe problema ponovne aktivacije bilo je jedan od kqu~nih uslova za uspe{no klonirawe sisara.
Diferencirane }elije su veoma razli~ite iako je sastav wihovog geneti~kog materijala isti. Genom sadr`i program razvi}a, uputstva koji }e geni biti aktivni u odre|enim }elijama i kada. Nisu svi geni sve vreme aktivni u svim }elijama.
Do pre nekoliko decenija malo se znalo o tome kako pojedini geni kontroli{u razvi}e i na koji na~in reaguju na razli~ite signale iz organizma i okoline. Molekularna genetika obezbedila je istra`iva~ima fine tehnike za prou~avawe razvojnih mutacija i donela veliki napredak u razumevawu geneti~ke kontrole razvi}a.
Genetika razvi}a je oblast koja se brzo razvija i obuhvata neke od najzanimqivijih i najte`ih problema u biologiji danas. Istra`iva~i koji se bave tom problematikom koriste ve}i broj vrsta i mutanata s promewenim obrascima razvi}a. Najvi{e se prou~avaju vo}na mu{ica, neki crvi i biqke i mi{ kao model razvi}a sisara. Prou~avawe mutacija omogu}ilo je da se utvrdi kako odre|eni geni
Vo}na mu{ica i ovaj crv koriste se za prou~avawe razvi}a.
uti~u na proces razvi}a. Tako su kod vo}ne mu{ice dobijeni mutanti kod kojih su se uobi~ajene strukture razvijale na potpuno pogre{nim mestima, na primer oko na nozi ili noge na glavi (umesto antena).
Pokazalo se da tako razli~iti organizmi kao {to su insekti, crvi i ki~mewaci (ukqu~uju}i i ~oveka) imaju vrlo sli~nu kontrolu razvi}a. U taj proces ukqu~ene su sli~ne grupe gena, sa sli~nim redosledom na hromozomima. Ova ~iwenica ukazuje na to da se osnovni mehanizam pojavio vrlo rano u evoluciji i da se kasnije nije mnogo mewao.
Klon je geneti~ki istovetna kopija. Klonirawem se dobijaju identi~ne jedinke, }elije ili geni, koji su kopije jednog pretka (jedinke, }elije ili gena).
Klonirawe nije izum ~oveka. I u prirodi postoje klonovi – na primer, identi~ne kopije majke–biqke, nastale vegetativnim razmno`avawem (kao jagode ili perunike).
I u prirodi postoje klonovi – na primer, identi~ne kopije majke–biqke.
Nau~nici se bave klonirawem u laboratorijama na razli~itim vrstama. Kod biqaka je ovaj proces lak{i: mnogi tipovi }elija su sposobni da regeneri{u ~itavu novu biqku. Kod `ivotiwa je to znatno te`e, a naro~ito slo`enim pokazalo se klonirawe sisara. Identi~na `ivotiwa se mo`e razviti iz }elije embriona ili iz diferencirane }elije odrasle jedinke.
Iako nau~nici ve} godinama kloniraju slo`enije `ivotiwe, prvo uspe{no klonirawe sisara (ovca Doli, 1997. godine) pokrenulo je lavinu novih pitawa koja se, pre svega, odnose na na{u vrstu. Da li je slede}e klonirawe qudi? Pored svih eti~kih i pravnih problema, treba imati na umu ~iwenicu da je do sada mawe od 3% poku{aja klonirawa uspevalo, a mnogi naizgled uspe{ni klonovi (ukqu~uju}i i Doli) imali su ozbiqnih problema sa zdravqem.
Neke vrste su pogodne za geneti~ke analize: brzo se razmno`avaju, lako se gaje u kontrolisanim uslovima, istra`iva~i mogu da prate osobinu kroz veliki broj generacija. Kada je re~ o na{oj vrsti situacija je druga~ija. @ivimo u vrlo razli~itim uslovima, eksperimentalna ukr{tawa nisu ni mogu}a ni po`eqna, a du`ina `ivota i relativno mali broj potomaka dodatno ote`avaju pra}ewe na~ina nasle|ivawa.
Uprkos tome, saznawa o genetici ~oveka umno`avaju se velikom brzinom. Kao rezultat savremenih istra`ivawa, usmerenih pre svega na izu~avawe geneti~kih bolesti, imamo ~itave liste gena odgovornih za odre|ene osobine i oboqewa qudi. (Iako na{ genom sadr`i ukupnu naslednu informaciju, naj~e{}e se u javnosti geni spomiwu upravo u kontekstu zdravqa i bolesti.)
Zna~aj poznavawa geneti~kih bolesti pove}ao se sa razvojem medicine, iskorewivawem ili kontrolom mnogih bolesti koje su harale u pro{losti i znatnim pove}awem prose~ne du`ine `ivota.
Neki od poreme}aja i oboqewa su monogeni – uslovqeni promenama na samo jednom genu, a neki poligeni, tj. odre|eni ve}im brojem gena i pod znatnim uticajem sredinskih ~inilaca. Jedan broj slo`enih poreme}aja uzrokovan je promenama na nivou hromozoma.
Geneti~ari koriste razli~ite metode, koje ukqu~uju prou~avawe rodoslovnih stabala, analizu hromozoma, kao i istra`ivawe genoma ~oveka – odre|ivawe redosleda nukleotida i polo`aja gena na hromozomima.
Pod genomom ~oveka podrazumeva se ukupna geneti~ka informacija u qudskim }elijama. Genom se ~esto poredi s kwigom. On sadr`i hiqade naslednih podataka o nama, zapisanih biohemijskim jezikom koji koristi samo ~etiri slova: A, T, G , C. Istra`iti genom je kao pro~itati kwigu, odrediti redosled slova i polo`aj re~i – otkriti celokupnu informaciju zapisanu u na{im genima.
Istraživawe poznato kao „Projekat genoma čoveka” privuklo je izuzetnu pažwu 2001. godine, kada je objavqeno da je poznata struktura našeg genoma, makar u prvoj, nepotpunoj verziji. Ubrzo zatim (2003–2004.) završena je i objavqena potpuna verzija Ovaj rezultat značajan je i zato što je to bio prvi ispitani genom kičmewaka, oko 25 puta veći od najvećeg prethodno analiziranog.
Ovo istra`ivawe ve} je dalo mnoge zna~ajne rezultate, a novi se tek o~ekuju. Poznavawe genoma obe}ava veliki napredak u odr`avawu zdravqa i pove}awu o~ekivane du`ine `ivota qudi.
Jedan od tradicionalnih metoda koje su geneti~ari koristili da bi utvrdili na~in preno{ewa osobina kod ~oveka jeste analiza rodoslovnih stabala. Ona omogu}uje da se obrasci nasle|ivawa prate unutar porodice kroz vi{e generacija.
Rodoslovna stabla pokazuju srodni~ke veze. Za ozna~avawe se koriste standardni simboli: krugovi predstavqaju `enske osobe, kvadrati mu{ke. Roditeqi su me|usobno povezani horizontalnom linijom, a vertikalna vodi do potomaka, koji se re|aju po redosledu ro|ewa (generacije se obele`avaju rimskim brojevima). Tamnom bojom obele`ava se ispoqena osobina (ili bolest) koja se prati.
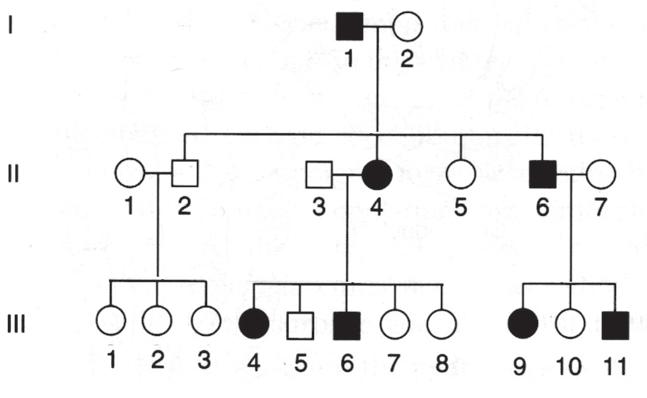
Na osnovu analize rodoslovnih stabala mo`e se zakqu~iti da li se neka osobina nasle|uje dominantno ili recesivno, da li se odgovaraju}i gen nalazi na autozomu ili na polnom hromozomu. To se, u slu~aju mnogih osobina, pokazalo kao vrlo vredna istra`iva~ka tehnika. Koristi se i daqe kao dodatak molekularnogeneti~kim tehnikama, a va`na je i za klini~ku praksu i geneti~ko savetovawe.
Mnoge osobine pokazuju jednostavne obrasce nasle|ivawa (koje nazivamo mendelovskim) i mogu da se pove`u s odre|enim genima na autozomima ili polnim hromozomima.
Na internet stranici http://www.ncbi.nlm.nih.gov/Omim mo`e se na}i katalog gena i geneti~kih poreme}aja ~oveka.
Razli~ite osobine qudi, me|u wima i veliki broj oboqewa, nasle|uju se autozomno recesivno ({to zna~i da su odre|ene genima koji se nalaze na autozomima i da se ispoqavaju kada se na|u u homozigotnom stawu – u dve kopije). Na takav na~in se nasle|uju brojni poreme}aji koji su poznati kao „uro|ene gre{ke metabolizma”, a koji nastaju usled nedostatka nekog va`nog biohemijskog proizvoda.
Primer recesivnog nasle|ivawa je albinizam, do kojeg dolazi usled nedostatka pigmenta. Kod ~oveka (kao i kod drugih sisara) javqa se mutacija u genu odgovornom za sintezu melanina, tamnog pigmenta kose, o~iju i ko`e. Kao posledica mutacije nema proizvodwe pigmenta. Albino qudi imaju vrlo svetlu ko`u i kosu i svetloplave o~i. Kod recesivnih homozigota biohemijski put za stvarawe melanina je blokiran, dok je kod heterozigota jedna ispravna kopija dovoqna za normalnu proizvodwu pigmenta.
Ova forma patuqastog rasta nasle|uje se autozomno dominantno (detaq slike Las meninas {panskog slikara Velaskeza).
Albinizam se nasle|uje autozomno recesivno.
S druge strane, neke osobine i oboqewa pokazuju autozomno dominantan na~in nasle|ivawa. To zna~i da }e se ispoqiti i kod heterozigota. Na taj na~in nasle|uju se, recimo, patuqast rast ili Hantingtonova bolest (neurolo{ka bolest sa smrtnim ishodom), kao i pojava vi{ka prstiju na rukama ili nogama (polidaktilija).
Nasle|ivawe nekih osobina je vezano za pol Svako od nas dobio je po jedan X-hromozom od majke, a od oca ili X ili Y. @ene su od oca nasledile X-hromozom, a mu{karci Y. Odavno je prime}eno da se neki poreme}aji i oboqewa, kao {to su nerazlikovawe boja i hemofilija (sklonost krvarewu usled poreme}enog zgru{avawa krvi), javqaju mnogo ~e{}e kod mu{karaca nego kod `ena. Razlog je u tome {to se ti geni nalaze na X -hromozomu. Po{to mu{karci nemaju drugi X-hromozom, recesivne osobine se kod wih ~e{}e ispoqavaju nego kod `ena.
Uro|eni poreme}aji u raspoznavawu crvene i zelene boje predstavqaju tipi~an primer X vezanih recesivnih osobina. U populacijama evropskog porekla oni se javqaju kod jednog od 12 mu{karaca i kod jedne od 250 `ena.
^esto se svi poreme}aji raspoznavawa boja pogre{no ozna~avaju kao daltonizam. Me|utim, u nauci se taj termin odnosi samo na uro|ene poreme}aje u raspoznavawu crvene i zelene boje. Naziv poti~e od nau~nika Daltona (Xon Dalton, 1766 – 1844), koji je patio od ovog poreme}aja i jo{ kao dete nije mogao da uo~i crvene tre{we u zelenom li{}u.
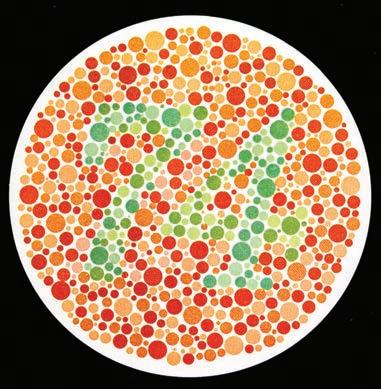
Ovakve slike slu`e za otkrivawe poreme}aja u razlikovawu boja. Osobe koje ne razlikuju crvenu i zelenu boju vide na ovoj slici broj 21.
@ene koje su heterozigoti ne ispoqavaju navedenu osobinu, mogu da razlikuju boje, ali prenose taj alel na polovinu svog potomstva (one su „nosioci“). Sinovi koji ga naslede ne}e razlikovati boje. ]erke koje ga naslede bi}e nosioci. Kod `ena se ova osobina ispoqava samo ako se recesivni alel na|e u homozigotnom stawu.
Hemofilija se javqala sa visokom u~estalo{}u u XIX veku u kraqevskim porodicama
Evrope, gde su bili ~esti brakovi bliskih srodnika. Poznato je da je engleska kraqica Viktorija bila nosilac mutacije, a 18 od 69 wenih potomaka je, tako|e, imalo taj recesivni alel.
^ak i male promene u geneti~koj informaciji mogu da imaju znatne posledice. Velike promene u gra|i, koli~ini i organizaciji geneti~kog materijala ostavqaju velike posledice, a ~esto mogu da imaju i smrtni ishod. (O posledicama promene u gra|i hromozoma kod qudi bilo je re~i u poglavqu o mutacijama.)
Povremeno, kao posledica nepravilnog razdvajawa tokom }elijske deobe, dolazi do promena u broju hromozoma: pojavi se neki hromozom vi{e ili mawe. (Podsetite se {ta su aneuploidije, trizomije i monozomije.) Posledice po nosioce su razli~ite. Pokazalo se da: – ve}ina takvih promena dovodi do smrti jo{ tokom razvi}a, – promene u broju autozoma imaju ozbiqnije posledice od promena u broju polnih hromozoma.
Kod qudi, nosioci monozomija ne do`ive ro|ewe. Nosioci trizomija pokazuju ne{to boqe pre`ivqavawe ako je re~ o vi{ku polnih hromozoma ili malog autozoma. Vi{ak nekog od velikih autozoma po pravilu ima smrtni ishod.
Najzna~ajnija trizomija autozoma je Daunov sindrom ili trizomija hromozoma 21, koja se javqa sa u~estalo{}u pribli`no 1 na 800 (do 1 na 1100) `ivoro|ene dece. Te osobe imaju 47 hromozoma jer se mali hromozom 21 nalazi u tri (umesto u dva) primerka. Imaju karakteristi~an izgled lica i gra|u tela, mentalnu zaostalost razli~itog stepena, usporen razvoj motornih ve{tina i govora, slabije mi{i}e i reflekse, probleme sa srcem, ve}u podlo`nost nekim bolestima kao {to su leukemija i Alchajmerova bolest.
U~estalost pojave Daunovog sindroma dramati~no raste s pove}awem starosti majke. Na primer, u~estalost je 1/1000 dece kod majki koje imaju 30 godina, a desetostruko je ve}a kod majki koje imaju 40 godina.
Promene u broju polnih hromozoma nemaju tako te{ke posledice kao kada je re~ o autozomima, pa u qudskim populacijama postoje razli~ite varijante
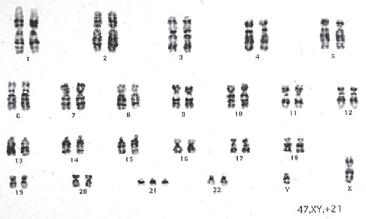
Hromozomi osobe sa Daunovim sindromom
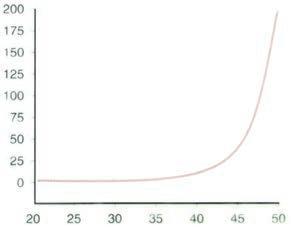
U~estalost pojave Daunovog sindroma (na 1 000 ro|enih) u zavisnosti od starosti majke
ovih aneuploidija. Jedno u nekoliko hiqada `ivoro|ene dece ima poreme}aj u broju polnih hromozoma koji daje Tarnerov ili Klinefelterov sindrom.
Tarnerov sindrom se javqa kod osoba koje naslede samo jedan X-hromozom, pa zato imaju 45 hromozoma (obele`ava se kao 45, X0). Fenotipski, te osobe su `ene (jer je Y-hromozom neophodan za razvi}e mu{kog pola, a ako ga nema, obavezno se razvijaju `enske karakteristike), ali su im polni organi nerazvijeni i sterilne su. Obi~no su, mada ne uvek, normalne inteligencije.
Vi{ak X-hromozoma kod mu{karaca (47, XXY) daje Klinefelterov sindrom. Fenotipski, te osobe su mu{karci, ali imaju i neke `enske karakteristike (~ije razvi}e, usled prisustva dva X-hromozoma, nije potpuno potisnuto). Sterilni su, a kod oko polovine slu~ajeva postoji neka forma mentalne zaostalosti.
U qudskim populacijama otkrivene su i druge kombinacije, sa znatno mawim fenotipskim posledicama, na primer `ene sa tri X-hromozoma (47, XXX) i mu{karci sa dva Y-hromozoma (47, XYY).
Sve boqe poznavawe genetike ~oveka dovelo je do razvoja mnogobrojnih na~ina geneti~kog testirawa, kao i {iroke primene geneti~kog savetovawa. Savremenim metodama mogu se jo{ pre ro|ewa (prenatalnom dijagnostikom) utvrditi nepravilnosti u broju i strukturi hromozoma, ali i mnogi genski defekti. Primenjuju se različiti pristupi, kao što su analiza hromozoma u uzorcima ćelija fetusa, analiza proteina ili direktna analiza DNK. U rutinske procedure spada analiza određenih proteina u krvi majke radi otkrivanja najčešćih aneuploidija (pre svega Daunovog sindroma). Posebno su važni kontrola i savetovawe trudnica starijih od 35 godina zbog povećanog rizika od pojave Daunovog sindroma kod dece starijih majki.
U pojedinim slu~ajevima preduzima se geneti~ka pretraga u populaciji – tra`i se odre|eni genotip kod novoro|en~adi ili odraslih. Ciq je, kod dece, da se postavi rana dijagnoza i primeni odgovaraju}a terapija, a kod odraslih – da se identifikuju nosioci mutacija i da se procene rizici za wihovo potomstvo. Ovaj pristup je u nekim zajednicama dao upe~atqive rezultate – znatno je smawena u~estalost nekih recesivnih oboqewa.
Veliki zna~aj imaju geneti~ka savetovali{ta,~ija je uloga pru`awe geneti~ke informacije i saveta. Tu budu}i roditeqi mogu da se informi{u o tome koliki je rizik da }e dobiti dete s naslednom bole{}u ukoliko ve} imaju obolelo dete ili ro|aka. Procena rizika nije uvek jednostavna. Mnogo je jednostavnija kod poreme}aja koji se nasle|uju autozomno dominantno, kao što je Hantingtonova bolest: ako je jedan od roditeqa oboleo (heterozigot), šansa da će dete imati tu mutaciju je 50%.
Me|utim, sa sve {irim i potpunijim poznavawem na{eg genoma javqaju se i veliki eti~ki i pravni problemi. Da li }e biti diskriminacije qudi na osnovu geneti~kih podataka? Ko, kada i kako sme da raspola`e geneti~kim podacima o nekoj osobi? Iako su ta pitawa donedavno spadala u domen fantastike, danas to postaje realnost.
Iako na mnoge nasledne bolesti uti~e vi{e geneti~kih i sredinskih ~inilaca, kod izvesnog broja monogenih oboqewa (izazvanih promenama u samo jednom genu) bi}e mogu}a primena genske terapije, tj. zamena nefunkcionalnog gena drugim, koji }e obezbediti dovoqne koli~ine nedostaju}eg biohemijskog proizvoda.
U najzanimqivije i najte`e probleme u genetici ~oveka spada pitawe kakav je uticaj nasle|a, a kakav sredine na na{e pona{awe? Odrediti doprinos razli~itih geneti~kih i sredinskih ~inilaca qudskom pona{awu nikada nije bio lak zadatak. Jedan od osnovnih problema je kako precizno definisati i „izmeriti“ takve osobine (agresivnost ili inteligenciju, na primer). Osim toga, osobine pona{awa su slo`ene osobine, na wihovo ispoqavawe uti~e veliki broj gena, kao i niz razli~itih faktora sredine.
U prou~avawu genetike pona{awa, u analizama porodica i populacija koriste se razli~ite metode – od pore|ewa blizanaca, do analiza na nivou DNK i pronala`ewa gena vezanih za pojedina pona{awa. Mogu}e lokacije odgovaraju}ih gena utvr|ene su u slu~aju nekih mentalnih bolesti. Komplikovanije je tragawe za genima za, recimo, osobine li~nosti. Pri tom se ne smeju gubiti iz vida vi{estruki i slo`eni uticaji sredine.
Veza pona{awa i nasle|a jasno je utvr|ena kod nekih poznatih i relativno ~estih poreme}aja. Primer za to je mentalna zaostalost u slu~aju trizomije 21 ili nekih monogenih poreme}aja metabolizma.
U dana{we vreme sve vi{e se istra`uje geneti~ka osnova slo`enih poreme}aja, kao i osobina li~nosti. Traga se, na primer, za genima povezanim sa {izofrenijom, disleksijom (nesposobno{}u ~itawa) ili pona{awem poznatim kao „tragawe za novim“ (potreba da `ivot bude ispuwen neprestanim promenama i uzbu|ewima).
Pona{awe poznato kao „tragawe za uzbu|ewima“ tako|e ima geneti~ku osnovu.
Kakve su dru{tvene posledice istra`ivawa geneti~ke osnove pona{awa? Velika je opasnost od nerazumevawa, pojednostavqewa, pa i zloupotreba. Jedan od opomiwu}ih primera je zloupotreba testova inteligencije u prvim decenijama XX veka, {to je poslu`ilo kao osnov za diskriminaciju odre|enih grupa qudi.
Pojednostavqena – i pogre{na – tuma~ewa ~esto se javqaju u popularnim prikazima. Na primer, pre nekoliko godina nau~nici su, vr{e}i eksperimente na mi{evima, utvrdili vezu jednog gena s pove}anom sposobno{}u za u~ewe. Taj gen je u {tampi odmah nazvan, efektno ali neta~no, „genom za pamet”.
Promi{qen i adekvatan pristup je naro~ito va`an kad se postavi pitawe uticaja nasle|a i sredine kod osobina kao {to su inteligencija, agresivnost, sklonost kriminalnom pona{awu i sl., koje su skop~ane s nizom socijalnih, politi~kih i pravnih problema.
Pitawa i zadaci
1. [ta je genetika?
2. Navedite nekoliko eksperimentalnih organizama koji se naj~e{}e koriste u geneti~kim istra`ivawima.
3. Osnovna pravila nasle|ivawa otkrio je:
a) ^arls Darvin, b) Karl Line, v) Gregor Mendel, g) Dmitrij Ivanovi~ Mendeqejev.
4. Mendelova jedinica nasle|ivawa danas se naziva: a) hromozom, b) gamet, v) gen, g) polni hromozom.
5. Objasnite razliku izme|u pojmova gen i alel, homologi hromozomi i nehomologi hromozomi, homozigot i heterozigot, dominantni alel i recesivni alel.
6. Heterozigot ima: a) iste alele b) razli~ite alele v) samo jedan alel
7. Navedite primere razli~itih na~ina nasle|ivawa.
8. Mu{karac koji ne razlikuje crvenu i zelenu boju prene}e alel za tu osobinu: a) na polovinu svoje dece, bez obzira kog su pola, b) na svu svoju decu, v) samo na sinove, g) samo na }erke.
9. [ta je geneti~ka rekombinacija?
10. Objasnite zna~aj mutacija za `ivi svet.
11.Mutacije nastaju kada se deo nasledne informacije: a) izostavi, b) duplira, v) preokrene (obrne se redosled), g) svi navedeni odgovori su ta~ni.
12.[ta su mutageni i kakav je wihov zna~aj? Navedite primere.
13.Mutacije:
a) zahvataju iskqu~ivo male delove gena, b) uvek dovode do pojave bolesti, v) uvek su korisne, g) uvek su {tetne, d) predstavqaju osnovni izvor raznovrsnosti `ivog sveta.
14.Ako vrsta ima 2n = 20 hromozoma, koliko }e hromozoma biti u tipi~noj somatskoj }eliji, na primer }eliji ko`e, a koliko u gametu?
15.Pojava jednog hromozoma vi{ka ili mawka naziva se: a) poliploidija b) kariotip v) rekombinacija g) aneuploidija
16.U kojim oblastima na{eg `ivota je uticaj geneti~kih istra`ivawa najve}i? Navedite neke primere.
17.Kakav je zna~aj geneti~kog savetovawa?
18.[ta je genska terapija?
Geneti~ka istra`ivawa
Posvetite deo ~asa onome {to ste pro~itali ili ~uli o genetici i geneti~kim istra`ivawima – u kwigama, {tampi, na televiziji, na Internetu. Kako se ove teme tretiraju u stru~noj, a kako u popularnoj literaturi?
Objasnite kako mo`emo da razlikujemo pojedina~ne hromozome i za{to je to va`no.
Dve vrste mogu da imaju isti broj hromozoma (npr.: {impanze i gorile imaju po 48 hromozoma), a da pokazuju upadqive razlike u osobinama. Kako biste to objasnili?
Boje i pol
Nasle|ivawe jednog broja osobina vezano je za pol. Tipi~an primer za to je nerazlikovawe crvene i zelene boje, koje se javqa mnogo ~e{}e kod mu{karaca nego kod `ena. Da li ih vi razlikujete? Za testirawe sposobnosti razlikovawa boja koriste se specijalne tablice, tj. slike sa~iwene od ta~aka raznih boja. Jedna od tih slika nalazi se u poglavqu Nasle|ivawe vezano za pol (str. 74). Koji broj vidite na woj?
Ozonski omota~ Ozonski omota~ oko Zemqe {titi nas od najve}eg dela UV zra~ewa, koje je povezano s o{te}ewem DNK u }elijama ko`e i mogu}om pojavom raka ko`e. Zbog toga je stawe tog za{titnog sloja od velike va`nosti za nas. Sakupite podatke o tome {ta izaziva o{te}ewa, odnosno „rupe“ u ozonskom omota~u i {ta se preduzima da bi se ozonski omota~ o~uvao i spre~ila wegova daqa o{te}ewa.
Uvo|ewe neke strane vrste, namerno ili slu~ajno, mo`e da izazove ozbiqne posledice. Recimo, opstanak retkih i jedinstvenih vrsta na okeanskim ostrvima, kao {to je Galapagos, ugro`avaju doma}e `ivotiwe koje je ~ovek tu naselio – koze, psi i sviwe. Takvih primera ima mnogo. Sakupite podatke o wima i napi{ite rad ili organizujte diskusiju na tu temu.
Geni, zdravqe, bolest
Dana{we poznavawe geneti~ke osnove velikog broja oboqewa i poreme}aja uporedite s onim {to se znalo pre 50 ili 100 godina. Kako saznawa iz oblasti genetike uti~u na savremenu medicinsku praksu, na zdravstveno stawe stanovni{tva i prose~nu du`inu `ivota?
Klonirawe
O klonirawu se sve vi{e govori. Sakupite podatke o organizmima koji su uspe{no klonirani u laboratoriji.
Genetika i dru{tvo u novom milenijumu
Napredak nauke otvara nove mogu}nosti, ali donosi i niz problema s kojima se ranije nismo suo~avali. Kakvi su eti~ki, pravni i socijalni problemi vezani, na primer, s klonirawem qudi, geneti~kim testirawem i na~inom na koji }e se koristiti dobijene informacije o genomu? Na koji na~in mogu da se za{tite interesi i dru{tva i pojedinca?
@iva bi}a su izgra|ena od ne`ivih molekula, a sam `ivot rezultat je molekulskih me|udejstava. ]elije, kao osnovne jedinice gra|e svih `ivih organizama, sastoje se od velikog broja razli~itih molekula. Me|u wima su zastupqeni mali molekuli jednostavne gra|e (npr. voda, ugqen-dioksid, amonijak), ne{to ve}i i slo`eniji molekuli, kojima pripada uloga gradivnih jedinica (amino-kiseline, nukleotidi, masne kiseline, monosaharidi) i veliki, slo`eni molekuli – biomakromolekuli (polisaharidi, lipidi, proteini, nukleinske kiseline), kojima se pripisuju najzna~ajnije uloge u }eliji. Poseban zna~aj za odr`avawe i obnavqawe `ivota imaju dve klase biomakromolekula: nukleinske kiseline –dezoksiribonukleinska (DNK) i ribonukleinska (RNK), i proteini
I pored ogromne raznovrsnosti organskih molekula u }eliji, molekulska organizacija svake, pa i najslo`enije }elije u su{tini je veoma jednostavna. Svi biomakromolekuli, kao nosioci najva`nijih `ivotnih funkcija, izgra|eni su od malog broja gradivnih jedinica. Proteini su izgra|eni od samo dvadeset razli~itih amino-kiselina. Povezuju}i se razli~itim redosledom u duga~ke, nerazgranate lance, koji naj~e{}e sadr`e od nekoliko stotina do nekoliko hiqada jedinica, tih dvadeset amino-kiselina mogu da izgrade ogroman broj razli~itih proteinskih molekula. Na sli~an na~in, samo ~etiri vrste nukleotida mogu da izgrade prakti~no neograni~en broj razli~itih molekula DNK.
Struktura i uloga proteina, nukleinskih kiselina i drugih biomakromolekula, povezanost wihove strukture i uloge, kao i wihova me|udejstva predmet su istra`ivawa molekularne biologije. Ciq ove nauke, koja se razvila u drugoj polovini XX veka, jeste da objasni molekularnu osnovu razli~itih biolo{kih pojava i procesa. Molekularni pristup je vremenom osvajao sve biolo{ke discipline, tako da se savremena biolo{ka nauka ne mo`e ni zamisliti bez istra`ivawa na molekularnom nivou.
Saznawa do kojih je molekularna biologija do{la tokom svoje kratke i bogate istorije na{la su i svoju primenu. Razvijen je novi vid biotehnologije – molekularna biotehnologija, popularno nazvana geneti~ko in`ewerstvo (poglavqe Molekularna biotehnologija) Ona se zasniva na mogućnostima manipulisawa genetičkim materijalom radi daqeg unapređivawa bioloških nauka, medicine, veterinarstva, farmaceutske tehnologije, poqoprivrede, šumarstva i drugih oblasti qudske delatnosti.
Podsetite se onoga {to ste u prvom razredu nau~ili o nukleinskim kiselinama. Osnovna jedinica gra|e oba tipa nukleinskih kiselina, DNK i RNK, jeste nukleotid. Nukleotidi koji se nalaze u sastavu DNK su dezoksiribonukleotidi, a oni u sastavu RNK – ribonukleotidi. Svaki nukleotid sastoji se od jedne azotne baze, jedne pentoze1 i jedne fosfatne grupe (–RO 4) (sl.3.1).Nukleotidi u nukleinskim kiselinama sadr`e dva tipa azotnih baza –purinske i pirimidinske. Purinske baze (purini) u sastavu nukleinskih kiselina su adenin (A) i guanin (G), a pirimidinske baze (pirimidini) su timin (T), citozin (C) i uracil (U). Razlike u hemijskom sastavu DNK i RNK su slede}e: u sastavu DNK nalaze se azotne baze A, G, T i C, dok se u sastavu RNK nalaze A, G, U i C; pentoza u sastavu DNK je 2’-dezoksiriboza, dok se u sastavu RNK nalazi riboza.
Molekuli DNK i RNK mogu se zamisliti kao lanci u kojima je svaka karika jedan nukleotid, s tim {to se molekuli DNK sastoje od dva lanca, dok su molekuli RNK jednolan~ani. Nukleotidi su me|usobno povezani kovalentnim vezama izme|u fosfatne grupe jednog i pentoze narednog nukleotida u nizu. Zato se ka`e da fosfatne grupe i pentoze ~ine okosnicu polinukleotidnog lanca. Na jednom kraju lanca uvek se nalazi slo-
Struktura nukleotida
Polinukleotidni lanac
1 Pentoze su {e}eri ~iji se ugqenikov skelet sastoji od pet ugqenikovih atoma, koji se ozna~avaju s 1' (prim), 2' ... 5'.
bodna fosfatna grupa vezana za 5’ ugqenikov atom pentoze. Taj kraj je ozna~en kao 5’-kraj polinukleotidnog lanca. Na drugom kraju nalazi se slobodna hidroksilna (–ON) grupa vezana za 3’ ugqenikov atom pentoze i taj kraj se naziva 3’-kraj lanca.
Redosled nukleotida u molekulu DNK predstavqa wegovu primarnu strukturu. Broj mogu}ih redosleda nukleotida u lancu DNK je 4n, pri ~emu je n broj nukleotida koji ga ~ine. Prirodni molekuli DNK sastoje se od velikog broja nukleotida, tako da je broj lanaca koji se razlikuju po redosledu nukleotida prakti~no neograni~en. Prema tome, primarna struktura DNK mo`e da obezbedi osnovu za ogromnu geneti~ku raznovrsnost biolo{kih vrsta.
Broj nukleotida i gena koji kodiraju proteine u genomu različitih vrsta
Vrsta Broj nukleotidnih parovaBroj gena (n)
Mycoplasma genitalium (bakterija sa najmawim genomom) 5,8 h 105 468
Escherichia coli (bakterija, omiqeni objekat molekularnih geneti~ara) 4,6 h 106 4289
Saccharomyces cerevisiae (pekarski kvasac, najjednostavnija jedno}elijska eukariota) 12 h 106 6300
Arabidopsis thaliana (model biqke cvetnice) 142 h 106 26000
Caenorhabtitis elegans (vaqkasti crv, jednostavna vi{e}elijska eukariota) 97 h 106 19000
Nukleinske kiseline i proteini su veliki i slo`eni molekuli. Pored primarne strukture, treba upoznati i wihovu trodimenzionalnu (prostornu) strukturu. Bez toga je nemogu}e razumeti na koji na~in jedan makromolekul ostvaruje svoju biolo{ku ulogu po{to je ona direktno uslovqena wegovom prostornom organizacijom. Prostornu strukturu DNK ~ine sekundarna, tercijarna i vi{i nivoi strukture.
Drosophila melanogaster (vo}na mu{ica) 137 h 106 14000 Homo sapiens (~ovek) 3,2 h 109 30000 Dvolan~ana zavojnica DNK
Sekundarna struktura DNK otkrivena je 1953. godine, kada su Votson (JamesWatson) i Krik (FrancisCrick) objavili model dvolan~ane zavojnice. Dva spiralna polinukleotidna lanca, koja ~ine molekul DNK, uvijeni su udesno jedan oko drugog. Oni se prostiru antiparalelno, {to zna~i da se naspram 5’-kraja jednog lanca nalazi 3’-kraj drugog. Naspram purinske baze u jednom lancu nalazi se pirimidinska baza u drugom, i to uvek naspram adenina (A) timin (T), a naspram guanina (G) citozin (C). Dva lanca su povezana vodoni~nim vezama izme|u naspramnih baza. Baze A i T su me|usobno povezane sa dve, a G i C sa tri vodoni~ne veze. Osnovni princip na kome se zasniva sekundarna struktura DNK je komplementarnost izme|u A i T, odnosno G i C Zahvaquju}i tom principu redosled nukleotida u jednom lancu uvek je odre|en redosledom nukleotida u onom drugom. Fosfatne grupe i pentoze ~ine okosnicu dvolan~ane zavojnice, a parovi purinskih i pirimidinskih baza nalaze se u unutra{wosti.
Parovi baza u DNK
Vodoni~ne veze su slabe, nekovalentne hemijske veze izme|u vodonikovog atoma koji je kovalentno vezan za jedan elektronegativan atom (tako da nosi ne{to pozitivnog naelektrisawa) i nekog drugog elektronegativnog atoma. U biomakromolekulima te veze se naj~e{}e formiraju izme|u dve peptidne grupe, izme|u dve hidroksilne grupe, izme|u amino i karboksilne grupe ili izme|u hidroksilne i karboksilne grupe.
Za razliku od DNK, molekuli
RNK su jednolan~ani. Wihova sekundarna struktura formira se tako {to komplementarne baze (A i U, odnosno G i C) grade kra}e ili du`e zavojnice unutar istog lanca RNK, spajaju}i se vodoni~nim vezama.
Sekundarna struktura RNK
Parovi A==T i G ≡C imaju vrlo sli~an prostorni oblik i iste dimenzije. Unutar dvolan~ane zavojnice zauzimaju isti polo`aj u odnosu na wenu zami{qenu osu. To otkri}e bilo je kqu~no za re{avawe sekundarne strukture DNK. U kwizi Dvolan~ana zavojnica sam Votson o tome ka`e: „Iznenada, uo~io sam da par A–T, koga odr`avaju dve vodoni~ne veze, ima identi~an oblik kao par G–C koga odr`avaju najmawe dve vodoni~ne veze.Sve vodoni~ne veze izgledale su kao da se formiraju prirodno; nisu bili potrebni nikakvi trikovi da bi se ta dva tipa baznih parova izjedna~ila po obliku. ... Dva nepravilna niza baza mogla bi biti pravilno spakovana u centar zavojnice ako bi purin uvek bio vezan vodoni~nim vezama sa pirimidinom. [tavi{e, na~in povezivawa vodoni~nim vezama ukazivao je da se A uvek sparuje sa T, dok G mo`e da se sparuje samo sa S.”
Prora~uni pokazuju da u }elijama svih vrsta bakterija, biqaka i `ivotiwa du`ina dvolan~ane zavojnice DNK mnogostruko prema{uje pre~nik }elije. Prema tome, DNK mora da bude vi{estruko ispresavijana da bi se uop{te mogla smestiti u }eliju. To podrazumeva da, osim sekundarne strukture, postoje i drugi nivoi prostorne organizacije DNK. Tercijarna struktura DNK treba da obezbedi ne samo weno sme{tawe u prostor hiqadama puta mawi nego {to je ona sama ve} i weno funkcionisawe. Tercijarnu strukturu DNK u jedru eukariotskih }elija odr`avaju proteini koji su za wu ~vrsto vezani.
Dvolan~ana zavojnica DNK
Nukleozomi (DNK namotana oko histona)
Nukleozomski paketi
Petqe
Dodatna spiralizacija
Metafazni hromozom
Pakovawe DNK u hromozom
Dvolan~ana DNK bakterijskog virusa T2 u ispru`enom stawu imala bi du`inu 62 μm, koja je oko 300 puta ve}a od pre~nika samog virusa. Du`ina DNK bakterije E.coli je oko 850 puta ve}a od du`ine bakterijske }elije. Ukupna du`ina dvolan~ane DNK u jednoj jedinoj }eliji ~oveka iznosi oko 2 m. Budu}i da se u telu odraslog ~oveka nalazi oko 1014 }elija, dolazi se do podatka da ukupna du`ina DNK iznosi oko 2 × 10¹¹ km, {to je mnogo puta vi{e od obima Zemqe (4 × 10⁴ km) ili rastojawa izme|u Zemqe i Sunca (1,5 × 10⁸ km). Pri tom je pre~nik tipi~ne }elije sisara oko 20 μm, a wenog jedra, u ko-
U svim }elijama DNK se nalazi u hromozomima. Hromozomi su tvorevine karakteristi~nog oblika koje se pojavquju u jedru eukariotskih }elija samo tokom }elijske deobe. (O hromozomima je bilo vi{e re~i u poglavqu Nasle|ivawe biolo{kih osobina / Hromozomska osnova nasle|ivawa.) U periodu izme|u dve }elijske deobe hromozomski materijal – hromatin –rasprostrawen je po celom jedru kao difuzna masa, da bi se tokom }elijske deobe kondenzovao grade}i hromozome ~iji je broj u jednoj }eliji, po pravilu, karakteristi~an za vrstu organizma. Analize su pokazale da je DNK u hromatinu vezana s proteinima koji se mogu svrstati u histone i nehistonske proteine hromatina. Va`na uloga u odr`avawu strukture hromatina pripisuje se histonima. Histoni su grupa malih, pozitivno naelektrisanih proteina. Zahvaquju}i naelektrisawu ~vrsto se vezuju za DNK, koja nosi negativno naelektrisane fosfatne grupe, i omogu}uju weno „pakovawe” u jedro. Ima ih u relativno velikoj koli~ini u jedru svake eukariotske }elije.
Pribli`no u isto vreme kada su otkrivene nukleinske kiseline Gregor Mendel (Gregor Mendel) ustanovio je pravila nasle|ivawa, ali je ostalo nepoznato da li su Mendelovi „nasledni faktori” (danas je poznato da su to geni) proteini ili nukleinske kiseline. Nau~nici su bili skloni da veruju da su proteini, za koje se ve} znalo da su nosioci mnogih va`nih biolo{kih uloga (enzimske, strukturne, regulatorne i dr.), odgovorni i za ~uvawe i preno{ewe naslednih informacija. Bilo je potrebno nekoliko decenija upornog nau~nog rada da bi se dobili eksperimentalni dokazi da su nasledni faktori, tj. geni, u stvari DNK. A kada su 1953. godine Votson i Krik objavili svoj model sekundarne strukture DNK, nije vi{e bilo sumwi. Postalo je sasvim jasno da je DNK nosilac naslednih informacija zato {to princip komplementarnosti nukleotida, na kome se zasniva wena struktura, omogu}uje da se geneti~ka informacija prenosi na pouzdan i efikasan na~in kroz generacije }elija i kroz samu }eliju – od DNK do proteina. O na~inu preno{ewa geneti~ke informacije bi}e re~i u poglavqima koja slede.
Frensis Krik je 1958. godine prikazao protok geneti~kih informacija kroz generacije i kroz }eliju slede}om {emom.
DNK DNK RNK protein replikacija transkripcija translacija
[ema pokazuje da se molekuli DNK, ~iji su pojedini delovi ozna~eni kao geni, pre svake }elijske deobe udvajaju u procesu replikacije (DNK¬→DNK). Replikacija DNK se odvija na na~in (poglavqe Replikacija DNK) koji obezbe|uje da, posle }elijske deobe, k}erke–}elije dobiju identi~an skup naslednih informacija kakav je imala roditeqska }elija. Da bi }elija ostvarila sve biohemijske procese neophodne za odr`avawe `ivota i obavila sve svoje uloge, ~esto specifi~ne, neophodno je da sinteti{e razli~ite proteine. Svojom enzimskom, regulatornom i drugim va`nim ulogama (o kojima }e biti re~i u poglavqu Biolo{ka uloga proteina) proteini odr`avaju sve `ivotne funkcije u organizmu. Uloga proteina strogo je uslovqena wihovom strukturom, a ona je odre|ena geneti~kom informacijom „zapisanom” u vidu redosleda nukleotida u DNK, tj. u genima. Prikazana {ema pokazuje da se geneti~ka informacija prenosi kroz }eliju – od DNK, gde je „zapisana”, do proteina, koji }e
je ostvarivati. U preno{ewu geneti~ke informacije kroz }eliju kqu~nu ulogu imaju molekuli RNK i procesi transkripcije (prepisivawa) i translacije (prevo|ewa). U procesu transkripcije (poglavqe Transkripcija), na DNK kao matrici sinteti{u se molekuli RNK koji su verne kopije pojedinih gena (DNK → RNK). Istovremeno, molekuli RNK predstavqaju matrice na kojima }e se u procesu translacije (poglavqe Translacija) sintetisati proteini (RNK→ protein). Transkripcija i translacija su, dakle, procesi u kojima se geneti~ka informacija, sadr`ana u strukturi DNK, prevodi u strukturu proteina, od kojih }e zavisiti sve strukturne i funkcionalne karakteristike jedne }elije.
Osim uloge da prenose genetičke informacije kroz ćeliju, od gena do proteina, molekuli RNK imaju još neke značajne biološke funkcije u ćeliji. Svaka ćelija, naime, sadrži više vrsta RNK: informacione (iRNK), ribozomske (rRNK), transportne (tRNK), RNK koje imaju regulatornu ulogu i RNK s katalitičkom aktivnošću. Uloga prenosilaca genetičkih informacija i matrica za sintezu proteina pripada molekulima iRNK. Ribozomske RNK čine deo strukture ribozoma – ćelijskih „fabrika” proteina, a tRNK su „tumači” genetičke informacije (poglavqe Transportne RNK) Sve RNK nastaju u procesu transkripcije: iRNK su kopije gena koji nose informaciju o strukturi proteina, dok su ostale RNK kopije posebnih gena.
VA@NO
Geneti~ke informacije se ~uvaju u molekulima DNK kao poruke ispisane nukleotidima umesto slovima. Kroz generacije }elija one se prenose u neizmewenom obliku procesom replikacije DNK koji uvek prethodi }elijskoj deobi. A kroz }eliju, iz jedra u citoplazmu, prenose se posredstvom iRNK koje nastaju „prepisivawem” (transkripcijom) gena. Potom se u procesu translacije, „prevode” u redosled amino-kiselina u proteinima koji su odgovorni za sve vitalne procese u }eliji.
Pitawa i zadaci
Zaokru`ite ta~ne odgovore.
1.Purinske baze su:
a) adenin i timin, b) timin, citozin i uracil, v) citozin i guanin, g) adenin i guanin, d) adenin i citozin, |) adenin, citozin i uracil.
2.Pirimidinske baze su:
a) adenin i timin, b) timin, citozin i uracil, v) citozin i guanin, g) adenin i guanin, d) adenin i citozin, |) adenin, citozin i uracil.
3.Timidin je:
a) vitamin, b) nukleozid, v) nukleotid, g) amino-kiselina, d) polisaharid, |) ni{ta od navedenog.
4. Jediwewe koje ne mo`e da bude sastavni deo nukleotida je: a) pirimidin, b) izopren, v) riboza, g) purin, d) fosfatna grupa.
5.Polinukleotid je polimer:
a. čija dva kraja imaju istu strukturu. b. koji sačiwavanajmawe 20 različitih monomernih jedinica. v. čije su monomerne jedinice azotne baze. g. čije su monomerne jedinice nukleotidi. d. čije su monomerne jedinice amino-kiseline.
6. Osnovne jedinice gra|e nukleinskih kiselina su:
a) amino-kiseline, b) nukleotidi, v) monosaharidi, g) masne kiseline, d) polisaharidi, |) nukleozidi.
7.Dezoksiribonukleinska kiselina:
a) izgra|ena je od ponovqenih monomernih jedinica, b) sastoji se od dva paralelna polinukleotidna lanca, v) sadr`i uridin kao monomernu jedinicu, g) sadr`i amino-kiseline kao monomerne jedinice, d) sve navedeno je ta~no, |) ni{ta od navedenog nije ta~no.
8.Ako je bazni sastav molekula DNK takav da 24% ~ini guanin i 26% adenin, onda je sadr`aj timina i citozina slede}i: a) T = 26%, S = 24%, b) T = 74%, S = 76%, v) T = 74%, S = 26%, g) T = 24%, S = 26%, d) T = 76%, S = 74%, |) T = 24%, S = 74%, e) ni{ta od navedenog.
9.Koja se od navedenih azotnih baza nalazi u iRNK, ali ne i u DNK: a) adenin, b) citozin, v) guanin, g) uracil, d) timin.
10. Samo }e DNK, a ne i RNK, biti radioaktivna ako se eksperimentalnoj `ivotiwi u hrani daje radioaktivno obele`eni: a) adenin, b) citozin, v) guanin, g) uracil, d) timin.
11. Radioaktivno obele`avawe RNK mo`e se posti}i upotrebom radioaktivno obele`enog jediwewa: a) timina, b) adenina, v) dezoksiriboze, g) uracila, d) svakog od navedenih jediwewa, |) jediwewa navedenih pod b) i g), e) nijednog navedenog jediwewa.
12. Koji od navedenih baznih parova su standardni bazni parovi u dvolan~anoj DNK: a) adenin–timin, b) uracil–adenin, v) citozin–guanin, v) guanin-adenin?
13. U dvolan~anoj zavojnici DNK: a) pojedina~ni polinukleotidni lanci nisu spiralni, b) vodoni~ne veze se formiraju izme|u susednih purinskih i pirimidinskih baza koje pripadaju istom polinukleotidnom lancu, v) adenin iz jednog lanca povezuje se vodoni~nim vezama sa timinom iz drugog lanca, g) guanin iz jednog lanca povezuje se vodoni~nim vezama sa timinom iz drugog lanca, d) adenin iz jednog lanca povezuje se vodoni~nim vezama sa citozinom iz drugog lanca, |) guanin iz jednog lanca povezuje se vodoni~nim vezama sa citozinom iz drugog lanca.
14. Votson–Kirkov model sekundarne strukture DNK podrazumeva: a) trolan~anu strukturu, b) dva polinukleotidna lanca koji se prostiru u suprotnim smerovima, v) sparivawe baza A i G,
g) kovalentne veze izme|u baza, d) ni{ta od navedenog, |) sve navedeno.
15. Geneti~ka informacija sadr`ana u DNK zapisana je u obliku:
a) redosleda nukleotida, b) redosleda amino-kiselina, v) redosleda {e}era i fosfata u okosnici molekula DNK, g) broja nukleotida, d) broja {e}ernih ostataka u okosnici molekula DNK.
16. ^iwenica da je DNK nosilac geneti~kih informacija ukazala je na to: a) da bi bazni sastav DNK razli~itih vrsta trebalo da bude identi~an, b) da bi DNK u razli~itim tkivima istog organizma trebalo da ima isti bazni sastav i primarnu strukturu, v) da bi bazni sastav DNK trebalo de se mewa u toku razvi}a i sa starewem, g) sve navedeno je ta~no, d) ni{ta od navedenog nije ta~no.
17. Protok geneti~ke informacije kroz }eliju usmeren je:
a) od RNK, preko proteina do DNK, b) od RNK, preko DNK do proteina, v) od DNK, preko proteina do RNK, g) od DNK, preko RNK do proteina, d) od proteina, preko DNK do RNK, g) od proteina, preko RNK do DNK.
18. Proces u kojem DNK slu`i kao matrica za sintezu RNK naziva se: a) translacija, b) reverzna transkripcija, v) transkripcija, g) replikacija, d) ni{ta od navedenog.
19. Proces u kojem RNK slu`i kao matrica za sintezu proteina naziva se: a) translacija, b) reverzna transkripcija, v) transkripcija, g) replikacija, d) ni{ta od navedenog.
20. Koja od navedenih vrsta RNK ima ulogu matrice za sintezu proteina: a) rRNK, b) tRNK, v) iRNK, g) nijedna od navedenih RNK, d) sve navedene RNK?
Kao i nukleinske kiseline, i proteini su jednostavne hemijske gra|e. Sastoje se od samo dvadeset razli~itih amino-kiselina. Ali po{to se molekul proteina mo`e sastojati od velikog broja amino-kiselina, broj mogu}ih redosleda amino-kiselina, odnosno razli~itih molekula proteina je ogroman.
Od samo dvanaest amino-kiselina moglo bi da nastane ~ak 103000 razli~itih molekula proteina, od kojih bi svaki imao 340 amino-kiselina u nizu. Koliko je taj broj veliki, najboqe se vidi iz slede}eg prora~una: kada bi se od svake od 103000 vrsta proteina uzeo samo jedan jedini molekul, wihova ukupna masa bila bi mnogostruko ve}a od mase Zemqe.
Amino-kiseline se povezuju peptidnim vezama grade}i nerazgranate polimere – polipeptide. Broj i redosled amino-kiselina u polipeptidnom lancu predstavqa wegovu primarnu strukturu. Amino-kiseline su jediwewa koja sadr`e dve funkcionalne grupe, amino-grupu (–NH2) i karboksilnu grupu (–SOON), vezane za isti ugqenikov atom. Amino-kiseline koje se nalaze u sastavu proteina mogu se klasifikovati na vi{e na~ina, ali se naj~e{}e razvrstavaju na osnovu polarnosti i naelektrisawa bo~nih grupa (tab. 1).
Tabela 1. – Podela amino-kiselina prema polarnosti i naelektrisawu bo~nih grupa
Nepolarne
amino-kiselina oznaka
Polarne
Op{ta struktura amino-kiselina (R – bo~na grupa).
Nenaelektrisane Negativno naelektrisane Pozitivno naelektrisane amino-kiselina oznaka amino-kiselina oznaka amino-kiselina oznaka alanin Ala, A glicin Gly, G asparaginska Asp, D lizin Lys, K valin Val, V serin Ser, S glutaminska Glu, E arginin Arg, R leucin Leu, L treonin Thr, T histidin His, H izoleucin Ile, I cistein Cys, C prolin Pro, P tirozin Tyr, Y fenilalanin Phe, F asparagin Asn, N triptofan Trp, W glutamin Gln, Q metionin Met, M
Danas je poznata primarna struktura ogromnog broja proteina. Ti podaci se ~uvaju u velikim bazama podataka i dostupni su putem Interneta. Do najpoznatijih baza podataka mo`e se do}i na slede}im internet-adresama: http://www.rcsb.org/pdb/ i http://www3.ncbi.nlm.hih.gov/Entrez/index.html/
Primarna struktura proteina u potpunosti je odre|ena genimana na~in koji je obja{wen upoglavqu Biolo{ka uloga nukleinskih kiselina Me|utim, proteini imaju i karakteristi~nu prostornu strukturu, od koje zavisi wihova uloga u }eliji. Ta struktura se odr`ava slabim, nekovalentnim vezama koje se ostvaruju izme|u bo~nih grupa amino-kiselina i zato zavisi od wihovog redosleda. Slabe veze se mogu mestimi~no raskidati i ponovo formirati uz mali utro{ak energije. Zahvaquju}i tome proteini imaju promenqivu prostornu strukturu. Upravo to im omogu}uje da mewaju svoju biolo{ku aktivnost u skladu s promenqivim potrebama }elije i tako ostvare svoje biolo{ke uloge.
Promene primarne strukture, dakle, mogu se odraziti na ulogu proteina. U nekim slu~ajevima promena samo jedne amino-kiseline u proteinskom lancu mo`e da dovede do potpunog gubitka wegove biolo{ke aktivnosti. To se doga|a kada se zbog promene te amino-kiseline mewa prostorna struktura onog dela proteina koji je bitan za wegovu ulogu.
Primer te{kih posledica promene samo jedne amino-kiseline u molekulu hemoglobina jeste te`ak oblik anemije poznate kao anemija srpastih }elija. Kada je glutaminska kiselina na {estom mestu u polipeptidnom lancu zamewena valinom, hemoglobin je slabo rastvorqiv i stvara agregate usled kojih eritrociti imaju izmewen (srpast) oblik . Takvi eritrociti imaju kratak vek i uzrok su ovom smrtonosnom oboqewu.
Prostornu strukturu proteina ~ine sekundarna, tercijarna i kvaternarna struktura.
Polipeptidni lanac se organizuje u prostoru zato {to te`i da zauzme najstabilniji mogu}i oblik. Organizuje se najpre tako {to zauzima jedan od dva oblika sekundarne strukture – α-zavojnicu ili β-plo~u. Ta dva oblika su podjednako stabilni i istovremeno jedino mogu}a zato {to su stabilniji od svih ostalih.
Na slici desno prikazana je α-zavojnica. Ona nastaje tako {to se izme|u atoma koji pripadaju svakoj ~etvrtoj amino-kiselini u polipeptidnom lancu obrazuju vodoni~ne veze, sa`imaju}i polipeptidni lanac u zavojnicu.
N-veze
Sekundarna struktura proteina u obliku α-zavojnice
α-spirale
U β-plo~i polipeptidni lanac nije spiralizovan kao u α-zavojnici, ve} izdu`en. Ovu strukturu odr`avaju vodoni~ne veze koje se obrazuju izme|u udaqenih delova istog polipeptidnog lanca grade}i „plo~u”. U razli~itim delovima istog polipeptidnog lanca ~esto su zastupqena dva oblika sekundarne strukture. Izme|u wih se nalaze kra}i ili du`i neure|eni delovi lanca. Na mestima gde je neure|en (i zbog toga mawe stabilan) polipeptidni lanac se i daqe savija, tako da zadobija loptast (globularan) oblik koji predstavqa wegovu tercijarnu strukturu. U tercijarnoj strukturi rali~itih proteina udeo α-zavojnica, β-plo~a i neure|enih delova je razli~it. Kao rezultat prostornog organizovawa strukture, polipeptid zadobija i specifi~nu biolo{ku aktivnost, pa se tek sada za wega mo`e koristiti termin protein. Neki proteini nemaju globularan, ve} izdu`en oblik. To su fibrilarni proteini i oni naj~e{}e imaju strukturnu ulogu. Primeri takvih proteina su kolagen i α-keratin, koji grade ko`u, krzno, vunu i kosu sisara, kao i β-keratin, koji gradi perje, ko`u, kanxe i kqunove ptica i gmizavaca.
neure|eni delovi
Tercijarna struktura proteina β-plo~e
U nekim slu~ajevima nekoliko α-zavojnica me|usobno povezanih vodoni~nim vezama grade trolan~anu zavojnicu. Takvu strukturu imaju kolagen i α-keratin. Kolagen je najzastupqeniji protein u organizmu ki~mewaka. Nalazi se u kostima, zubima, hrskavici, tetivama i zidovima krvnih sudova. Poreme}aji strukture kolagena uzrok su brojnih bolesti koje se nazivaju kolagenske bolesti. Neke od wih nastaju zbog nepravilnog na~ina ishrane. U osnovi glavnih simptoma smrtonosne bolesti skorbut, a to su o{te}ewa ko`e, pucawe zidova krvnih sudova i sporo zara{}ivawe rana, le`i nepravilna struktura kolagenskih vlakana. Uzrok nekih kolagenskih bolesti je i nedostatak kolagena. Jednu grupu takvih bolesti, poznatu pod nazivom Ehlers–Danlosovi sindromi, karakteri{e visoka elasti~nost zglobova i ko`e. Ovi sindromi obi~no se zapa`aju kod cirkuskih artista, – tzv. „qudi od gume”.
Sekundarna struktura proteina u obliku
β-plo~e
Struktura kolagena
Neki proteini se sastoje od samo jednog polipeptidnog lanca, dok mnogi sadr`e vi{e istih ili razli~itih lanaca. Za takve slo`ene proteine, koji se nazivaju oligomeri, ka`e se da imaju kvaternarnu strukturu. Deo oligomera koji ima odre|enu biolo{ku ulogu naziva se subjedinica. Ona se obi~no sastoji od jednog polipeptidnog lanca, ali ih mo`e biti i nekoliko. Na primer, hemoglobin se sastoji od ~etiri polipeptidna lanca. Oni grade dve subjedinice od kojih svaka sadr`i po dva polipeptidna lanca, kao i prosteti~nu grupu – hem – koja vezuje kiseonik.
Prelazak proteina iz neaktivnog u aktivan oblik (aktivacija) ~esto je rezultat razlagawa oligomera na subjedinice ili, pak, udru`ivawa subjedinica u oligomer.
Kvaternarna struktura hemoglobina. ^etiri polipeptidna lanca su obojena `utom, qubi~astom, zelenom i plavom bojom, a hem – crvenom.
^ak i najjednostavniji jedno}elijski organizmi sadr`e veliki broj razli~itih vrsta proteina. Na primer, bakterije sadr`e oko 5 000, a razli~ite }elije ~ovekovog organizma ~ak 10 000–20 000 razli~itih vrsta proteina. Proteini obavqaju veoma va`ne i brojne biolo{ke uloge. Kada se klasifikuju prema ulogama koje obavqaju, najve}u klasu ~ine enzimi. To su biolo{ki katalizatori. Do danas je poznato oko 2 000 razli~itih enzima, od kojih svaki katalizuje razli~itu vrstu hemijske reakcije. Oblik, gra|a i uloga svake }elije zavise od specifi~nosti wenog metabolizma, a ta specifi~nost odre|ena je skupom enzima koje }elija sinteti{e. Promene u koncentraciji ili strukturi enzima ~esto su uzrok razli~itih bolesti.
Drugoj velikoj klasi pripadaju proteini koji imaju transportnu ulogu. Hemoglobin i mioglobin su transporteri kiseonika u krvi, odnosno u mi{i}ima. Globulini seruma transportuju steroidne hormone kroz krvotok – od mesta wihove sinteze do mesta delovawa. Albumin seruma vezuje i prenosi neke lekove i toksine. Transferin je protein koji transportuje gvo`|e.
Neki proteini predstavqaju osnovne ~inioce kontraktilnih sistema u mi{i}ima. To su aktin i miozin.
Imunoglobulini i interferoni imaju ulogu da za{tite ~ovekov organizam od bakterija i virusa.
Neki proteini su hormoni (insulin, hormon rasta i dr.). Wima pripada va`na regulatorna uloga u organizmu.
Proteini imaju i ulogu rezervoara amino-kiselina kao hranqivih sastojaka za embrion. Takav protein je albumin jajeta.
Najzad, neki proteini su va`ni strukturni elementi `ivih sistema. Kolagen i elastin grade ko{tani matriks i ligamente, a tako|e daju ~vrstinu i elasti~nost organima i krvnim sudovima. Va`an strukturni protein u organizmu ~oveka je i α-keratin, koji u~estvuje u izgradwi epidermalnog tkiva.
VA@NO
Geneti~ke informacije se ~uvaju u molekulima DNK kao poruke ispisane nukleotidima umesto slovima. Kroz generacije }elija prenose se u neizmewenom obliku procesom replikacije DNK koji uvek prethodi }elijskoj deobi. A kroz }eliju, iz jedra u citoplazmu, prenose se posredstvom iRNK koje nastaju „prepisivawem” (transkripcijom) gena. Potom se u procesu translacije „prevode” u redosled amino-kiselina u proteinima, i to je primarna struktura proteina. Od primarne strukture zavisi wihova prostorna struktura, a od prostorne strukture zavisi uloga proteina u }eliji. Kao realizatori naslednih informacija, proteini su odgovorni za odvijawe svih vitalnih procesa.
Pitawa i zadaci
Zaokru`ite ta~ne odgovore.
1.Osnovne jedinice gra|e proteina su:
a) amino-kiseline, b) nukleotidi, v) monosaharidi, g) masne kiseline, d) polisaharidi, |) nukleozidi.
2.Koliko se razli~itih amino-kiselina koristi za sintezu proteina u }eliji: a) 60, b) 20, v) 10, g) 25?
3.Koja od navedenih amino-kiselina je nepolarna: a) lizin, b) prolin, v) arginin, g) serin, d) histidin?
4.Polipeptid je polimer: a) ~ija dva kraja imaju istu strukturu, b) koga ~ini najmawe dvadeset razli~itih monomernih jedinica, v) ~ije su monomerne jedinice azotne baze, g) ~ije su monomerne jedinice nukleotidi, d) ~ije su monomerne jedinice amino-kiseline.
5.Primarnu strukturu polipeptida predstavqa: a) broj amino-kiselina u polipeptidnom lancu, b) redosled amino-kiselina u polipeptidnom lancu, v) broj peptidnih veza u polipeptidnom lancu, g) zastupqenost pojedinih amino-kiselina u polipeptidnom lancu, d) dvadeset amino-kiselina koje se nalaze u sastavu proteina u svim }elijama.
6.Primarnu strukturu polipeptida odr`avaju:
a) slabe, nekovalentne veze, b) kovalentne, peptidne veze, v) vodoni~ne veze izme|u aminokiselinskih bo~nih grupa, g) elektrostati~ke interakcije izme|u aminokiselinskih bo~nih grupa.
7.Sekundarnu, tercijarnu i kvaternarnu strukturu polipeptida odr`avaju: a) peptidne veze, b) slabe, nekovalentne veze, v) kovalentne veze, g) sve navedene veze, d) nijedna od navedenih veza.
8.Jedan od nivoa strukture proteina je genetski determinisan. To je: a) primarna struktura, b) sekundarna struktura, v) tercijarna struktura, g) kvaternarna struktura.
9.Alfa (α) zavojnica i beta (β) plo~a su primeri: a) kvaternarne strukture proteina, b) sekundarne strukture proteina, v) sekundarne strukture nukleinskih kiselina, g) tercijarne strukture proteina, d) primarne strukture nukleinskih kiselina, |) primarne strukture proteina.
10. Trodimenzionalni oblik polipeptida predstavqa wegovu: a) primarnu strukturu, b) sekundarnu strukturu, b) tercijarnu strukturu, g) kvaternarnu strukturu.
11. Kvaternarnu strukturu imaju proteini koji se sastoje od: a) nekoliko stotina amino-kiselina, b) samo jednog polipeptidnog lanca, v) dva ili vi{e polipeptidna lanca, g) nekoliko hiqada amino-kiselina.
12. Proteini mogu da imaju: a) enzimsku ulogu, b) ulogu transportera, v) ulogu ~uvara i prenosilaca geneti~kih informacija, g) regulatornu ulogu, d) strukturnu ulogu, |) nijednu od navedenih uloga, e) sve navedene uloge, osim one pod v).
Pod genomom se podrazumeva skup naslednih informacija sadržanih u hromozomima jedne ćelije. Oblast molekularne biologije koja se bavi ispitivawem strukture genoma i organizacije genetičke informacije zove se genomika. Na prelazu iz XX u XXI vek, sa završetkom opsežnih projekata određivawa primarne strukture genoma čoveka i nekih drugih vrsta, ona je doživela procvat.
Najvi{e podataka o organizaciji eukariotskih genoma dobijeno je tek nedavno, po{to je odre|ena i objavqena primarna struktura genoma nekoliko eukariotskih vrsta – uglavnom onih koje molekularni biolozi u svojim istra`ivawima koriste kao „model organizme”. Kompletan redosled nukleotida u genomu pekarskog kvasca objavqen je 1996. godine, vaqkastog crva 1998, vo}ne mu{ice 2000, a prva, gruba verzija primarne strukture genoma ~oveka objavqena je 2001. godine. Informacije o tome dobi}ete na internet stranici http://www.genome.gov/10001772
Kada se uporede veličine genoma različitih eukariotskih vrsta, može se uočiti da veličina genoma nije uvek proporcionalna stepenu biološke složenosti organizama. Paradoksalno je, ali istinito da mnoge filogenetski starije vrste, jednostavnije strukturne i funkcionalne organizacije, često imaju mnogo veće genome od filogenetski mlađih, biološki složenijih vrsta, za koje je logično očekivati da poseduju veći broj gena. Tako, na primer, genomi mnogih insekata, mekušaca, riba i vodozemaca veći su od genoma čoveka, koji sadrži oko 3200000000 nukleotidnih parova.
Genom ~oveka je 200 puta ve}i od genoma najjednostavnije jedno}elijske eukariote, pekarskog kvasca, i isto toliko puta mawi od genoma amebe!
Zato se postavilo pitawe da li svi nizovi nukleotida u genomu nose informaciju (kod ili šifru) za sintezu proteina ili postoje i nizovi koji nemaju tu ulogu. Ispitivawa su potvrdila prisustvo nizova nukleotida koji ne kodiraju proteine i oni su označeni kao intergenski nizovi kada se nalaze između gena, odnosno kao introni kada se nalaze u samim genima. Tokom evolucije, zastupqenost ovih nizova nukleotida u genomima različitih vrsta rasla je s povećawem biološke složenosti organizama: u genomima prokariota mawe od 25% nukleotidnih nizova ne kodira proteine, u genomima jednoćelijskih eukariota wihov udeo je 25 – 50%, dok kod čoveka čine čak 98,5% genoma.
Nukleotidni nizovi, koji ne kodiraju proteine, često se nazivaju „smeće DNK”. Danas znamo da je ovaj naziv potpuno neopravdan s obzirom na to da ti nizovi imaju značajnu ulogu u kontroli složenih procesa u ćeliji i da tu ulogu ostvaruju kodirajući regulatorne molekule RNK. Nakon određivawa primarne strukture genoma velikog broja organizama postalo je jasno da ni broj gena koji kodiraju proteine, kao ni veličina genoma nisu u srazmeri s biološkom složenošću organizama. Složenost eukariotskih organizama, posebno viših eukariota, objašwava se evolucijom složenih mehanizama kojima se reguliše aktivnost gena. U tim mehanizmima značajnu ulogu imaju ne samo proteini već i regulatorne
RNK,kojesukodiranedelovimagenomazakojesedonedavnomislilodanesadržegenetičku informaciju.
Razvojgenomikedoneojemnoštvopodatakaoosobinamanukleotidnihnizovakojičine genomerazličitihvrstaorganizama.Porednizovanukleotidakojisuugenomuzastupqenisa samojednomkopijomilisnekolikokopija,postojeionikojiseponavqajumnogoputa.Među ponovqenimnizovimanukleotidarazlikujuse uzastopnoponovqeninizovi,kaoštosu sateliti,iponovqeninizovirasutipogenomu.
Sateliti suserijekratkihnizovanukleotidakojiseuzastopnoponavqajunekolikostotinahiqadadonekolikomilionaputa.Zastupqenostsatelitskihnizovaugenomimarazličitiheukariotskihvrstavarirauširokomopsegu.Kodsisara,ukqučujućiičoveka,ti ponovci,popravilu,činemaweod10%genoma,dokkodnekihvrstainsekatačineskoro polovinugenoma.Skoncentrisanisuuglavnomuregionimacentromera.
Ulogasatelitskihnizovanijepoznata.JasnojedaoninenoseinformacijuzasintezuproteinaiRNK,jersenikadane„prepisuju”.Smatrasedaučestvujuusparivawuhomolognih hromozomatokommejoze,iuodržavawustukturehromozoma,kaoidasutokomevolucije moglidabuduznačajnizaprocesenastankanovihvrsta.
Drugukategorijuponovqenihnizovanukleotidačine ponovqeninizovirasutipogenomu uoblikukraćihilidužihponovaka.Utenizoveubrajajuse:familijegena,uzastopno ponovqenigeniipokretnigenetičkielementi.
Ugenomimavi{e}elijskihorganizamagenikojipostojeusamojednojkopiji~ine25–50% odukupnogbrojagenakojinoseinformacijuzasintezuproteina.Ostalipripadaju familijamagena kojeimajudvailivi{e~lanova.Familijegenasesastojeod~lanovasli~neprimarnestrukture,anastalesuduplikacijamapreda~koggena.Proteinskiproizvoditihgena se,kaoisamigeni,odlikujusli~nomprimarnomstrukturomi~ine proteinskufamiliju
Unekimslu~ajevima,kada}elijaimapotrebudasinteti{eve}ekoli~ineproizvodanekog gena,tajgenjeumno`en,tj.postojiugenomuuve}embrojuuzastopnihkopija.Najpoznatiji primeriuzastopnogponavqawagenajesugenizarRNKitRNK.
Ugenomu~ovekapostojioko350genazarRNK.Tigenisenalazeutzv.sekundarnim su`ewima(iliorganizatorimajedarca)napethromozoma,itona13,14,15,21.i22.hromozomu.Svakiodovihskupovapredstavqajednutranskripcionujedinicuunutarkojese nalazetrigenazatrirazli~iterRNK.GenikojikodirajutRNKtako|esuumno`eniiprocewenojedaseugenomu~ovekanalazi1310wihovihkopija.
Familijegenaiumnoženigeničinesamomalideoponovqenihnizovarasutihpogenomu, awihovuvećinučine pokretnigenetičkielementi.Tosunizovinukleotidakojimewaju mestougenomu,pasunazvani„skoči-geni”.Wihovootkrićečetrdesetihgodina20.veka potpunojepromenilodotadašweviđewegenomakaorelativnonepromenqivestrukture. Prilikompromenemestaoriginalanniznukleotidanajčešćeostajenaprvobitnommestu, doksekopijaugrađujeunekodrugomestougenomu. Natajnačinsusepokretnigenetičkielementitokomdugogvremenaevolucijeumnožavaliugenomimaeukariota,iakojepromena mestarelativnoredakdogađaj.Danasonizauzimajučakoko45%genomačoveka.
Utvr|enojedamaweod3%genoma~ovekapripadanizovimanukleotidakojise prevodeuproteine,aulogapreostalih97%jo{uveknijepoznata.
Hajdedaizvedemojednostavnura~unicu!Savremene,veomaosetqivemetodeza analizuproteinskogsadr`aja}elijepokazujudaseutipi~nojeukariotskoj}eliji obi~nosinteti{e10–20hiqadarazli~itihvrstaproteina.Verovatnone}emomnogo pogre{itiakouzmemodase,uproseku,svakiodwihsastojiod400amino-kiselina. [ifruzasvakuamino-kiselinu~inetrinukleotida.Prematome,informacijuza sintezu20000razli~itihproteinaprose~nedu`ine400amino-kiselinamo`eda obezbedi24000000nukleotida(20000 ↔ 400 ↔ 3=24000000).Asvaka}elijaqudskogorganizmasadr`i3200000000nukleotida!Uzmimouobzirdaoko55%qudskog genoma~inemnogostrukoponovqeninizovinukleotidakojiseneprevodeuproteine. Oduzmemolitood3200000000,jo{uvekostaje1440000000nukleotida(45%). Istina,proteinise~estosastojeodnekolikopolipeptidnihlanaca,agenisu~esto zastupqeni u genomu u nekolikokopija.Alirazlika izme|u 1440000000 i 24000000nukleotidao~iglednosenemo`etomepripisati.
Premaprvojmolekularnojdefiniciji,genjedeogenomakojinosiinformacijuostrukturijednogenzima.Ovudefinicijujekasnijetrebaloprilagoditisledećimsaznawima:da semnogienzimiidrugiproteininesastojesamoodjednoglanacavećodnekolikopolipeptidnihlanacaidauprocesutranskripcijenastajunesamomolekuliiRNKvećimolekuli rRNK,tRNK,regulatornihRNKiRNKskatalitičkomaktivnošću,kojisedaqeneprevodeu proteine.Zatoje,umestoprincipa„jedangen–jedanenzim”,uvedenprincip„jedan gen–jedanpolipeptidnilanac”,adefinicijagenapreciznijejeformulisanaisadaglasi: genjedeoDNKkojiseprepisujeiliuiRNKzajedanpolipeptidnilanac,iliumolekulRNK, kojiseneprevodiupolipeptidnilanac.
Ustanovqenoje,me|utim,dasuunutargenanizovinukleotidakojisadr`einformacijuza sintezupolipeptidaispresecaninizovimakojituinformacijunesadr`e.Segmentigena kojiseprevodeustrukturupolipeptidanazvanisu egzoni,aumetnutisegmentikojisene prevode– introni.Zagenekojisadr`eintrone,atoseodnosinave}inugenafilogenetski mla|iheukariota,kaoinamnogegenestarijiheukariota,ka`esedasudiskontinuirani, odnosnodaimajumozai~nuilimodularnustrukturu.
Strukturagenazajedanprotein(α-tropomiozin)izglatkihmišićapacova.Egzonisuobojeni žutom,aintroniplavombojom.Brojevioznačavajuamino-kiselinekodiranepojedinimegzonima. Napočetkuikrajugena,uokviruprvogiposledwegegzona,nalazesenizovinukleotidakojisene prevode(šrafiranepovršine).Dužineegzonaiintronaprikazanesuproizvoqno.
Kod prokariota introni su retka pojava. Jedno}elijski eukariotski organizmi u svojim genomima imaju mali broj diskontinuiranih gena i u wima mali broj introna. Na primer, 96% gena u genomu pekarskog kvasca ne sadr`e introne, a samo 4% sadr`e. Od tih 4% diskontinuiranih gena, ve}ina sadr`i samo jedan intron, tj. dva egzona. Sa evolutivnim razvojem organizama, koji su postajali sve slo`eniji, pove}ava se i broj gena koji sadr`e introne, kao i prose~an broj introna po jednom genu. Tako, na primer, u genomu vo}ne mu{ice samo 17% gena ne sadr`e introne, a me|u diskontinuiranim genima, koji ~ine 83% ukupnog broja gena, najve}i broj je onih sa 1 do 4 introna. Najzad, u genomima sisara, vi{e od 90% gena su diskontinuirani, a broj i veli~ina introna u wima variraju u {irokim granicama.
U genomima sisara, ve}ina gena ima modularnu strukturu, a geni koji ne sadr`e introne su malobrojni. Neki geni sisara sadr`e samo nekoliko introna, a neki i vi{e od pedeset. Du`ina introna se ~esto meri hiqadama baznih parova. Wihova ukupna du`ina u jednom genu je, po pravilu, vi{estruko ve}a od ukupne du`ine egzona. U ve}ini gena ~oveka egzoni predstavqaju samo nekoliko procenata ukupne du`ine gena.
U genomu ~oveka najve}i gen je gen za mi{i}ni protein distrofin. Ima du`inu od 2 400 000 nukleotida i sadr`i ~ak 79 introna prose~ne du`ine po 30 000 nukleotida. Iako je distrofin veliki protein (sastoji se od 3685 amino-kiselina), u wegovom genu egzoni zauzimaju mawe od 1%, a introni vi{e od 99% ukupne du`ine.
Modularna priroda gena, sa egzonima kao nezavisnim jedinicama koje mogu da se kombinuju tokom geneti~ke rekombinacije (poglavqe Nasle|ivawe biolo{kih osobina/Rekombinacije), izuzetno je zna~ajna za evoluciju kao jedan od na~ina nastajawa novih proteina. Uz to, ona predstavqa vrlo ekonomi~no re{ewe – proceweno je da svega 1500 do 2000 egzona, kombinuju}i se na razli~ite na~ine, mo`e da obezbedi informaciju za sintezu svih 100000 razli~itih proteina – koliko ih, smatra se, ukupno ima u svim biqnim i `ivotiwskim vrstama na Zemqi.
Kombinovawe egzona –hipoteti~ki primer koji pokazuje kako kombinovawem samo 4 egzona mo`e da nastane 11 razli~itih polipeptida
Ova saznawa su dodatno iskomplikovala definiciju gena. Danas je o~igledno da se gen ne mo`e definisati kao kontinuirani niz nukleotida u DNK, a ne mo`e se ni zadr`ati princip „jedan gen – jedan polipeptid” jer jedan isti egzon mo`e da se prevede u delove razli~itih polipeptidnih lanaca. Mogu}a su dva re{ewa. Prvo je da se princip „jedan gen – jedan polipeptid” ipak zadr`i, pri ~emu se u slu~ajevima kada se isti egzon nalazi u razli~itim polipeptidima govori o genima koji se preklapaju. U na{em primeru na slici ima 11 gena koji kodiraju 11 polipeptida. Mnogi od wih „dele” isti egzon, pa ka`emo da se preklapaju (npr. geni za polipeptide 1, 2, 3, 4, 6, 7 i 8 preklapaju se u oblasti egzona 1, geni za polipeptide 1, 2, 4, 5, 7, 9 i 11 preklapaju se u oblasti egzona 3 itd.). Alternativno re{ewe je uvo|ewe obrnutog principa: „jedan polipeptid – jedan gen”. U ovom slu~aju gen se defini{e kao skup svih nizova nukleotida u DNK koji odgovaraju jednom polipeptidnom lancu. U na{em primeru gen za polipeptid 1 bio bi kontinuirani niz nukleotida koji obuhvata egzone 1, 2, 3 i 4, dok bi gen za polipeptid 7 bio diskontinuirani niz nukleotida koji obuhvata egzone 1 i 3.
Zamislite genom kao kwigu – i to ne kao bilo kakvu kwigu, ve} kao autobiografiju vrste – jer su u wemu zapisane ne samo informacije za sintezu proteina ve} i one koje govore o postanku i istoriji vrste. Poglavqa u toj kwizi su hromozomi, pa bi se autobiografija na{e vrste sastojala od 23 poglavqa. Svako poglavqe sadr`i mnogo stranica. To su geni. U na{oj autobiografiji ima ih oko 30 000. Na svakoj stranici nalazi se bar nekoliko pasusa teksta, a svaki od wih nosi neku informaciju. Pasus je egzon. Izme|u pasusa su umetnute fotografije, reklame, crte`i … To su introni. Pasusi se sastoje od re~i, a u ovoj kwizi sve re~i su troslovne svaka predstavqa {ifru za jednu amino-kiselinu. Kwiga je napisana geneti~kim jezikom u kome je svako slovo jedan nukleotid. Azbuka tog jezika ima samo ~etiri slova: A, T, G i C. Autobiografiju na{e vrste, ispisanu s ta ~etiri slova, ~ini niz du`ine 3 200 000 000 slova.
VA@NO
Genetičke informacije se čuvaju u molekulima DNK kao poruke ispisane nukleotidima umesto slovima. Kroz generacije ćelija one se prenose u neizmewenom obliku procesom replikacije DNK, koji uvek prethodi ćelijskoj deobi. Kroz ćeliju, iz jedra u citoplazmu, prenose se posredstvom iRNK, koje nastaju „prepisivawem” (transkripcijom) gena. Gen je deo molekula DNK, tj. niz nukleotida koji predstavqa informaciju za sintezu jednog polipeptidnog lanca ili molekula RNK. Taj niz nukleotida ne mora da bude kontinuiran. Posle transkripcije gena genetičke informacije se u procesu translacije „prevode” u redosled amino-kiselina u proteinima, a to je wihova primarna struktura. Od primarne strukture proteina zavisi wihova prostorna struktura, a od prostorne strukture zavisi uloga proteina u ćeliji. Kao realizatori naslednih informacija proteini su odgovorni za odvijawe svih vitalnih procesa.
Zaokru`ite ta~ne odgovore.
1. Pravilan redosled organizama prema veli~ini genoma (od najmaweg do najve}eg) jeste: a) kvasac, bakteriofag T2, vinska mu{ica, bakterija E.coli, ~ovek, b) bakteriofag T2, kvasac, bakterija E.coli, ~ovek, vinska mu{ica, v) bakteriofag T2, bakterija E.coli, kvasac, vinska mu{ica, ~ovek, Pitawa i zadaci
g) vinska mu{ica, bakteriofag T2, kvasac, bakterija E.coli, ~ovek, d) bakterija E.coli, kvasac, bakteriofag T2, vinska mu{ica, ~ovek.
2.Dezoksiribonukleinska kiselina koja ~ini celokupan genom ~oveka sadr`i:
a) oko tri hiqade nukleotidnih parova, b) oko tri miliona nukleotidnih parova, v) oko tri milijarde nukleotidnih parova, g) oko tri biliona nukleotidnih parova.
3.Ciq projekta humanog genoma bio je da se:
a) napravi detaqna mapa humanog genoma i da se upozna wegova primarna struktura, b) zaustavi razvoj tehnologije rekombinovane DNK, v) kloniraju qudska bi}a, g) ni{ta od navedenog.
4.Gen je deo molekula DNK koji nosi informaciju za sintezu:
a. jednog enzima.
b. jednog polipeptida ili jednog molekula RNK koji se ne prevodi u polipeptid.
v. proteina koji se sastoji od više polipeptidnih lanaca.
g. jednog polipeptida.
5.Za gene u genomima eukariota va`i jedna od navedenih tvrdwi:
a) svi su umno`eni, tj. prisutni u vi{e kopija, b) svi su prisutni u samo jednoj kopiji, v) neki su umno`eni, a neki nisu.
6.Geni eukariota imaju modularnu strukturu. To zna~i da:
a) sadr`e nizove nukleotida koji se prevode u strukturu proteina i nizove koji se ne prevode,
b) sadr`e samo nizove nukleotida koji se prevode u strukturu proteina, v) sadr`e samo nizove nukleotida koji se ne prevode u strukturu proteina.
7.Za introne se mo`e re}i:
a) da se nalaze u svim eukariotskim genima, b) da se ne transkribuju, v) da su svi pribli`no jednake du`ine, g) da su, po pravilu, kra}i od egzona, d) da ne nose informaciju za sintezu proteina, |) sve tvrdwe su ta~ne.
8.Za egzone se mo`e tvrditi:
a) da su delovi gena koji se ne transkribuju, b) da su delovi gena koji ne nose informaciju za sintezu proteina, v) da su delovi gena koji nose informaciju za sintezu proteina, g) da su u svakom eukariotskom genu prisutni u ve}em broju, d) da su delovi gena koji se ponavqaju.
Kao{tojeve}re~enoupoglavqu Sekundarnastrukturanukleinskihkiselina,sekundarnastrukturaDNKzasnivasenaprincipukomplementarnostidvapolinukleotidna lanca,{tozna~idajeredoslednukleotidaujednomlancuautomatskiodre|enredosledomudrugomlancu.]elijskojdeobiuvekprethodi replikacijaDNK – procesukojemse udvajakoli~inageneti~keinformacije.Pritom}elijaulaziudeobusadvostrukove}om koli~inomDNK,dabiposledeobeobek}erke–}elijeposedovaleistukoli~inuDNKkojuje imalaroditeqska}elija.
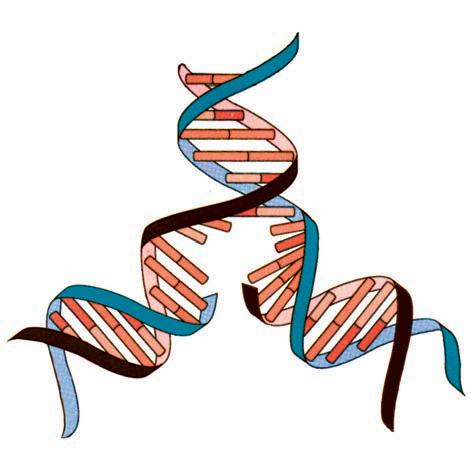
NovosintetisanilanciDNK
ReplikacijaDNK–semikonzervativanproces
TokomreplikacijeDNKdvapolinukleotidnalancaizdvolančanezavojnicerazdvajajuseisvakiodwihslužikaomatricazasintezunovog,komplementarnog lanca.Akosejedanroditeqskilanac označisAawemukomplementaran,drugi roditeqskilanacsA‘ tokomrplikacije lanacAslužikaomatricazasintezunovog lancaA‘,alanacA‘ kaomatricazasintezu novoglancaA.Poslećelijskedeobejedna kćerka–ćelijadobijaroditeqskilanacAi novosintetisanilanacA‘,adrugakćerka–ćelijadobijaroditeqskilanacA‘ i novosintetisanilanacA.Drugimrečima, svakakćerka–ćelijadobijaDNKukojojje jedanlanacroditeqskiadrugijenovosintetisan.ZatosekažedasereplikacijaDNK odvijana semikonzervativannačin (sl. 6.1).Takavnačinobezbeđujedaposlećelijskedeobesvakakćerka–ćelijadobijeisti skupnaslednihinformacijakaoonajkoji jeimalaroditeqskaćelija.Naime,genetičkainformacijasenatajnačinprenosikrozgeneracijećelijauneizmewenomobliku.Ako seimauvidudavišećelijskiorganizminastajuuzastopnimdeobamajednejedineoplođene jajnećelije,postajejasnodasemikonzervativnareplikacijaDNKistovremenopredstavqai načinprenošewagenetičkeinformacijekrozgeneracijeorganizama.
Proces replikacije je veoma slo`en, pa je najboqe prou~en na najjednostavni-joj – bakterijskoj }eliji. Molekul bakterijske DNK je kru`na, zatvorena dvo lan ~ana zavojnica. Replikacija zapo~iwe na odre|enom mestu i odvija se istovremeno u oba smera, istom brzinom. Proces se zavr{ava u te rminacionom regionu, koji se nalazi nasuprot mestu po~etka replikacije.
U eukariotskim }elijama molekuli DNK nisu kru`ni i replikuju se 10–20 puta sporije nego u prokariotskim zbog toga {to se, zajedno s proteinima, nalaze u slo`enoj strukturi hromatina. Replikacija DNK zapo~iwe istovremeno na mnogo mesta du` hromozoma i od svakog mesta na kome je zapo~ela odvija se istovremeno u oba smera. Na taj na~in se ona u eukariotskim }elijama ipak zavr{i za samo nekoliko sati.
Mesta na hromozomu na kojima se replikacija odvija imaju oblik slova Y i nazvana su replikativne viqu{ke. Tokom replikacije bakterijski hromozom sadr`i dve replikativne viqu{ke, od kojih se jedna kre}e u smeru kazaqke na satu, a druga – u suprotnom smeru. Eukariotski hromozomi istovremeno sadr`e ve}i broj replikativnih viqu{aka.
Replikacija bakterijske DNK
Roditeqski lanci DNK
Mesta po~etka replikacije
Novi lanci DNK
Replikativni mehurovi
Replikacija napreduje
Replikacija napreduje
Replikacija se zavr{ava
Replikacija eukariotske DNK
Iako je princip replikacije DNK veoma jednostavan, u ćeliji je to složen proces u kom učestvuje dvadesetak enzima. Samu reakciju dodavawa novog nukleotida na 3’-kraj rastućeg polinukleotidnog lanca katalizuju enzimi DNK polimeraze. DNK polimeraze su enzimi za čiju je aktivnost neophodno prisustvo lanca DNK, koji ima ulogu matrice, a to je roditeqski lanac DNK. DNK se replikuje tako što se DNK polimeraza kreće duž roditeqskog (matričnog) lanca, dodajući jedan po jedan dezoksiribonukleotid na 3’-kraj novog lanca DNK. Pri tome enzim strogo poštuje princip komplementarnosti: od četiri raspoloživa dezoksiribonukleotida, on u novi lanac DNK ugrađuje upravo onaj koji je komplementaran narednom nukleotidu u roditeqskom lancu DNK koji ima ulogu matrice. Ostali proteini, koji učestvuju u ovom složenom procesu, obezbeđuju da se on odvija jedanput i samo jedanput između dve ćelijske deobe, kao i sa što mawe grešaka kako bi se genetička informacija prenela u narednu generaciju ćelija u neizmewenom obliku.
Transkripcija je kqučan korak u prenošewu genetičke informacije od DNK do proteina. Pod transkripcijom se podrazumeva sinteza RNK „prepisivawem” primarne strukture dela DNK koji obuhvata jedan gen ili nekoliko gena. Kao rezultat transkripcije u ćeliji nastaju sve vrste RNK (poglavqe Biološka uloga nukleinskih kiselina) U ovom složenom i važnom procesu učestvuje veliki broj proteina, a katalizuju ga enzimi RNK polimeraze. Ispred svakog gena nalazi se promotor. To je niz nukleotida za koji se vezuju RNK polimeraza i proteini koji kontroli{u proces transkripcije. Ovi proteini upu}uju RNK polimerazu od kojeg mesta i kada da zapo~ne transkripciju. U po~etnoj fazi procesa RNK polimeraza i regulatorni proteini vezuju se za promotor grade}i tzv. po~etni transkripcioni kompleks. Posle aktivacije tog kompleksa dva lanca DNK se razdvajaju u du`ini od sedamnaest baznih parova. Tako nastaje „transkripcioni mehur”, u okviru kojeg jednolan~ani segmenti DNK postaju dostupni za sparivawe s komplementarnim ribonukleotidima.
Sinteza RNK odvija se tako {to se RNK polimeraza kre}e du` jednog od dva lanca DNK, dodaju}i jedan po jedan ribonukleotid na 3’-kraj rastu}eg lanca
RNK. Ugra|uju}i nukleotide, enzim strogo po{tuje princip komplementarnosti – od ~etiri raspolo`iva ribonukleotida u lanac
protein – aktivator transkripcije
DNK promotor mesto po~etka transkripcije
regulatorni proteini
RNK ugra|uje se upravo onaj koji je komplementaran narednom nukleotidu u DNK lancu koji ima ulogu matrice. Paralelno sa enzimom napreduje i transkripcioni mehur, koji je uvek iste veli~ine. Rastu}i lanac RNK je u svakom trenutku samo svojim 3’-krajem vezan za DNK s kojom gradi hibrid du`ine dvanaest baznih parova, dok se 5’kraj postepeno osloba|a. Kada enzim stigne na kraj gena, transkripcija se zaustavqa i novosintetisani lanac RNK se osloba|a s matrice. Zahvaquju}i strogom po{tovawu principa komplementarnosti tokom transkripcije, novosintetisani lanac RNK predstavqa vernu kopiju gena na kojem je sintetisan. Jedina razlika je u tome {to se naspram adenina (A) u DNK lancu–matrici u lanac RNK, umesto timina (T), uvek ugra|uje uracil (U). Kao matrica za sintezu RNK mo`e da poslu`i bilo koji od
RNK polimeraza
Po~etak transkripcije – formirawe po~etnog transkripcionog kompleksa na promotoru
Sparivawe lanca DNK
„Transkripcioni mehur“
RNK polimeraza
Smer kretawa polimeraze
Razdvajawe lanca DNK
Novi nukleotid
Matri~ni lanac DNK
hibrid DNK-RNK
Transkripcija
dva lanca DNK. Me|utim, postoje kontrolni mehanizmi koji obezbe|uju da se u oblasti jednog gena „prepisuje” samo jedan, i to uvek isti lanac DNK. U prokariotskim }elijama sinteza iRNK odvija se prakti~no istovremeno s translacijom, koja zapo~iwe na 5’-kraju jo{ nezavr{ene iRNK. Proizvodi transkripcije su funkcionalni molekuli iRNK, koji su u najve}em broju slu~ajeva kratkog veka (nekoliko sekundi ili minuta). Sinteza iRNK zapo~iwe onda kada je }eliji potreban proteinski proizvod nekog gena i posle nekoliko ciklusa translacije, kada se obezbedi dovoqna koli~ina odre|enog proteina, iRNK biva razgra|ena. Wena sinteza ubrzo mo`e ponovo da zapo~ne, ukoliko je to bakteriji potrebno.
Kod eukariota, me|utim, neposredni (primarni) proizvodi transkripcije gena koji kodiraju proteine, podle`u obradi jo{ u jedru.Obrada se odvija kroz nekoliko stupweva. Pre svega, na 5’-kraj primarnog transkripta, jo{ u toku transkripcije dodaje se 7-metil-guanozin. Tako transkript na svom 5’-kraju dobija strukturu koja je poznata kao 5’-kapa Ova struktura poslu`i}e u citoplazmi kao mesto za vezivawe ribozoma.
Na 3’-kraju primarnog transkripta tako|e se vr{i obrada. Skoro svi primarni transkripti gena koji kodiraju proteine na 3’-kraju dobijaju nizod 100do200 adeninskih nukleotida, tzv. poli-A rep. On uti~e na stabilnost iRNK i va`an je za transport zrelih iRNK iz jedra u citoplazmu.
Obrada primarnih transkripta obuhvata, tako|e, procese uklawawa introna i spajawa egzona (poglavqe [ta je gen). Naime, primarni transkripti su du`i od iRNK zato {to, pored kodiraju}ih nizova nukleotida (kopija egzona), sadr`e i nekodiraju}e nizove (kopije introna), dok iRNK sadr`e samo kodiraju}e
Sazrevawe iRNK u jedru
nizove nukleotida. „Iskrajawe” introna obavqa se unutar ~estica koje se nazivaju splajsozomi. One sadr`e sve enzime neophodne za ovaj slo`eni proces, koji, izme|u ostalog, zahteva i maksimalnu preciznost. Primarni transkript se mora presecati ta~no na granicama egzon/intron. Pomerawe za samo jedan nukleotid potpuno bi promenilo sve kodone u iRNK od tog mesta nadaqe i proizvelo pogre{nu informaciju za sintezu proteina. Po pravilu, u toku obrade primarnog transkripta „iskrajaju” se samo introni, a egzoni se povezuju onim redom kojim se nalaze u primarnom transkriptu. U mnogim slu~ajevima, me|utim, „iskrajaju” se delovi transkripta koji obuhvataju ne samo introne nego i egzone, posle ~ega se me|usobno povezuju nesusedni egzoni obrazuju}i razli~ite iRNK. Drugim re~ima, razli~itim na~inom obrade transkripta mo`e se od jednog transkripta dobiti nekoliko razli~itih proteina. Takav na~in obrade ozna~en je kao alternativna obrada transkripta. Poznato je da primarni transkripti mnogih gena mogu alternativnim na~inima obrade formirati razli~ite iRNK. Smatra se da je tokom evolucije alternativna obrada primarnih transkripta mogla da predstavqa brz i ekonomi~an na~in nastajawa novih proteina.
Rezultat obrade primarnih transkripta su „zrele” iRNK, koje sadr`e samo nizove nukleotida koji se prevode u proteine. Tek posle obrade iRNK postaju funkcionalne i transportuju se kroz jedarni ovoj u citoplazmu, gde }e poslu`iti kao matrice za sintezu polipeptida. Kod eukariota su, dakle, procesi transkripcije i translacije vremenski i prostorno odvojeni.
Pitawa i zadaci
Zaokru`ite ta~ne odgovore.
1.Replikacija DNK se odvija:
a) uvek pre }elijske deobe i samo jedanput u toku jednog }elijskog ciklusa, b) neposredno posle }elijske deobe i samo jedanput u toku jednog }elijskog ciklusa, v) vi{e puta u toku }elijskog ciklusa, g) uvek i pre i posle }elijske deobe.
2.Replikacija se odvija na semikonzervativan na~in, a to zna~i da: a) posle }elijske deobe jedna k}erka–}elija dobija oba roditeqska, a druga oba nova lanca DNK, b) posle }elijske deobe svaka k}erka–}elija dobija delove roditeqskih i novih lanaca DNK, v) posle }elijske deobe svaka k}erka–}elija dobija po jedan roditeqski i jedan novi lanac DNK.
3.Replikacija je proces kojim se:
a) geneti~ka informacija prenosi u neizmewenom obliku kroz }eliju, b) geneti~ka informacija prenosi u neizmewenom obliku kroz generacije }elija, v) izme|u dve }elijske deobe utrostru~uje koli~ina geneti~kog materijala u }eliji, g) u }eliji sinteti{e RNK koja }e poslu`iti kao matrica za sintezu proteina.
4.Enzimi koji katalizuju proces replikacije DNK su:
a) RNK polimeraze, b) DNK polimeraze, v) DNK ligaze, g) nukleaze, d) proteaze, |) kinaze.
5.Transkripcija je:
a) proces sinteze DNK, b) proces sinteze RNK naspram jednog od lanaca DNK koji slu`i kao matrica, v) proces sinteze proteina na iRNK koja slu`i kao matrica, g) proces udvajawa geneti~ke informacije, d) proces isecawa introna i spajawa ezona.
6.U toku transkripcije, naspram nukleotidnog niza 3’-GATC-5’ u lancu–matrici, u lanac RNK ugra|uje se niz:
a) 3’-CTAG-5’
b) 5’-CTAG-3’ v) 3’-GATC-5’
g) 5’-GATC-3’
d) 3’-CUAG-5’
|) 5’-CUAG-3’
7.Promotor je:
a) niz nukleotida koji se transkribuje,
b) niz nukleotida za koji se vezuju RNK polimeraza i regulatorni proteini, a nalazi se uvek ispred gena kome pripada, v) regulatorni niz nukleotida koji se mo`e nalaziti ispred ili iza gena kome pripada, g) niz nukleotida za koji se vezuje DNK polimeraza.
8. U eukariotskim }elijama, ~im se zavr{i transkripcija, jo{ u jedru zapo~iwe proces: a) obrade primarnog transkripta, b) sinteze proteina, v) replikacije, g) }elijske deobe, d) sinteze nukleotida.
9.U prokariotskim }elijama, jo{ pre nego {to se transkripcija zavr{i, zapo~iwe proces:
a) obrade primarnog transkripta, b) sinteze proteina, v) replikacije, g) }elijske deobe, d) sinteze nukleotida.
10. Obrada primarnih transkripata kod eukariota obuhvata: a) dodavawe poli -A repa na 3’-kraj, b) dodavawe „kape“ na 5’-kraj, v) uklawawe introna, g) spajawe egzona, d) sve navedeno.
11. Uklawawe introna iz primarnog transkripta i spajwe egzona obavqaju: a) proteaze, b) RNK polimeraze, v) splajsozomi, g) egzoni, d) ni{ta od navedenog.
12. Za eukariotske iRNK se mo`e tvrditi: a) da su obi~no kra}e od primarnih transkripta i da sadr`e kontinuirane nizove nukleotida koji se prevode u proteine, b) da su du`e od primarnih transkripta, v) da sadr`e i nizove nukleotida koji se prevode, kao i one koji se ne prevode u proteine, g) da sadr`e samo kopije introna, d) da sadr`e i kopije egzona i kopije introna.
PPrvi nukleotid (5’-kraj)
Drugi nukleotid
Tre}i nukleotid (3’-kraj) U C A G
Phe Ser Tyr Cys U
Phe Ser Tyr Cys
Leu Ser STOP STOP
Leu Ser STOP Trp
Leu Pro His Arg
Leu Pro His Arg
rimarna struktura proteina (poglavqe Primarna struktura proteina), dakle, odre|ena je geneti~kom informacijom koja je zapisana u genima u vidu redosleda nukleotida. Grupe od po tri susedna nukleotida predstavqaju kodove ({ifre) za pojedine amino-kiseline i nazvane su kodoni. Skup pravila koja povezuju svaku amino-kiselinu s odgovaraju}im kodonima naziva se geneti~ki kod (tab. 2). Broj razli~itih kodona je 64 (43 = 64), a u sastav proteina ulazi samo dvadeset amino-kiselina. Tako, u najve}em broju slu~ajeva jednoj amino-kiselini odgovara nekoliko razli~itih kodona. Razli~iti kodoni koji odre|uju polo`aj iste amino-kiseline u proteinu nazivaju se sinonimni kodoni. Me|u 64 kodona nalaze se i tri (UAA, UAG i UGA) koji ne odgovaraju nijednoj amino-kiselini, ve} predstavqaju „stop-signale”, tj. mesta na kojima se sinteza proteina zaustavqa. Posebno zna~ewe ima i kodon AUG koji istovremeno predstavqa kodon za metionin i „start-signal”, tj. mesto od kojeg translacija zapo~iwe.
Leu Pro Gln Arg
Leu Pro Gln Arg
Ile Thr Asn Ser
Ile Thr Asn Ser
Ile Thr Lys Arg
Met Thr Lys Arg
Val Ala Asp Gly
Val Ala Asp Gly
Val Ala Glu Gly
Val Ala Glu Gly
VA@NO
Geneti~ke informacije se ~uvaju u molekulima DNK kao poruke ispisane nukleotidima umesto slovima. Kroz generacije }elija one se prenose u neizmewenom obliku procesom replikacije DNK, koji uvek prethodi }elijskoj deobi. A kroz }eliju, iz jedra u citoplazmu, prenose se posredstvom iRNK koje nastaju „prepisivawem” (transkripcijom) gena. Gen je deo molekula DNK, tj. niz nukleotida koji predstavqa informaciju za sintezu jednog polipeptidnog lanca. Taj niz nukleotida ne mora biti kontinuiran. Po zavr{enoj transkripciji gena geneti~ke informacije se, u procesu translacije, „prevode” u redosled amino-kiselina u proteinima, i to je primarna struktura proteina. Proces translacije se zasniva na de{ifrovawu geneti~ke informacije koju nosi iRNK, uz po{tovawe skupa pravila koji se naziva geneti~ki kod. Od primarne strukture proteina zavisi wihova prostorna struktura, a od prostorne strukture zavisi uloga proteina u }eliji. Kao realizatori naslednih informacija, proteini su odgovorni za odvijawe svih vitalnih procesa
Translacija ili sinteza proteina je slo`en proces. Odvija se u nekoliko faza, uz u~e{}e ribozoma, iRNK, tRNK i velikog broja enzima. Tokom translacije dolazi do brojnih interakcija makromolekula, ali nikada ne dolazi do direktne interakcije kodona u iRNK i odgovaraju}ih amino-kiselina. Ipak, redosled ugra|ivawa amino-kiselina u polipeptidni lanac u potpunosti zavisi od redosleda kodona u iRNK. Amino-kiseline „prepoznaju” odgovaraju}e kodone posredstvom molekula tRNK.
Transportne RNK imaju veoma zna~ajnu ulogu u prevo|ewu geneti~ke informacije s jezika nukleotida na jezik amino-kiselina. One omogu}uju da se tokom translacije amino-kiseline ugra|uju u polipeptidni lanac redosledom koji odre|uje redosled kodona u iRNK. Molekuli svih tRNK imaju prostorni oblik koji podse}a na latini~no slovo L. Za jedan kraj molekula vezuje se amino-kiselina, a na suprotnom se nalazi antikodon – grupa od tri nukleotida komplementarna kodonu za amino-kiselinu koju odre|ena tRNK nosi.
]elije poseduju specifi~ne enzime koji obezbe|uju da se svaka amino-kiselina ve`e za ba{ woj odgovaraju}u, a ne za neku drugu tRNK. Vezivawem za tRNK amino-kiseline se aktiviraju, tj. zadobijaju energiju koja }e kasnije, u toku translacije, biti upotrebqena za formirawe peptidne veze.
Sinteza polipeptidnog lanca zasniva se na formirawu peptidne veze izme|u COOH-grupe na kraju rastu}eg polipeptidnog lanca i NH2-grupe aktivirane amino-kiseline. Tokom translacije redosled nukleotida u iRNK ~ita se u grupama od po tri u smeru 5’ 3’. Mesto svake amino-kiseline u rastu}em polipeptidnom lancu odre|uje se na osnovu komplementarnosti kodona u iRNK i antikodona u tRNK.
Proces sinteze proteina odvija se u ribozomima, koji imaju karakterističan sastav, oblik i karakterističnu građu. Sastoje se od dve podjedinice, male i velike, a svaka od wih predstavqa „paket” od nekoliko desetina molekula proteina i dva, tri ili četiri molekula
rRNK. U ovim malim „fabrikama za proizvodwu proteina” proteini i rRNK grade nekoliko aktivnih centara sposobnih da katalizuju različite reakcije tokom sinteze polipeptidnog lanca. Ribozomi sadrže posebna mesta za vezivawe tRNK i u svakom trenutku tokom translacije za ribozom su vezana dva molekula tRNK. Za jedno od tih mesta vezuje se tRNK koja nosi rastući polipeptidni lanac. To je tzv. P mesto. Za drugo, tzv. A mesto vezuje se tRNK koja donosi aktiviranu amino-kiselinu.
Najpre se ribozomske podjedinice i tRNK udružuju s iRNK gradeći tzv. početni translacioni kompleks. On može da otpočne sintezu polipeptidnog lanca, i to od tačno određenog mesta u iRNK. Odabirawem mesta u polinukleotidnom lancu od kog treba da započne prevođewe genetičke šifre određuje se tzv. okvir čitawa genetičke poruke (poglavqe Mutacije/Genske mutacije). U ćeliji je on određen stvarawem početnog translacionog kompleksa na tačno određenom mestu, a to je startni kodon (AUG), koji istovremeno predstavqa i kodon za metionin. Zato translacija uvek započiwe s tRNK koja nosi ovu amino-kiselinu. Izgradwa početnog kompleksa i pronalažewe startnog kodona veoma su složeni procesi, u kojima, pored ribozoma, iRNK i tRNK, učestvuju i brojni regulatorni proteini. Mnogi detaqi ovih procesa još uvek nisu poznati, ali ipak znamo da se u prokariotskim i eukariotskim ćelijama oni odvijaju na različit način. U trenutku kada nastane po~etni kompleks startni kodon se nalazi u oblasti P-mesta i za wega je vezana tRNK koja nosi metionin. Pri tom je A-mesto upra`weno i pokriva susedni kodon. Ono mo`e da primi tRNK „natovarenu” amino-kiselinom kojoj taj kodon odgovara. Kada se odgovaraju}a tRNK ve`e za A-mesto, raskida se veza izme|u metionina i tRNK u P-mestu. Umesto te veze, stvara se peptidna veza izme|u metionina i amino-kiseline vezane za tRNK u A-mestu. Sada se u P-mestu nalazi slobodna tRNK, a u A-mestu rastu}i polipeptidni lanac. On se za sada sastoji od samo dve amino-kiseline. U slede}em koraku ribozom mewa oblik, pomeraju}i se za ta~no tri nukleotida du` iRNK. Istovremeno, tRNK koja nosi prve dve amino-kiseline preme{ta se iz A-mesta u P-mesto, a slobodna tRNK napu{ta ribozom. Sada A-mesto pokriva novi kodon i slobodno je da primi novu tRNK, ~ime ciklus mo`e ponovo da po~ne. Na kraju svakog ciklusa rastu}i polipeptidni lanac du`i je za jednu amino-kiselinu.
Translacija se mo`e odvijati i u epruveti. Dodajte svih dvadeset amino-kiselina i polinukleotidnu matricu (iRNK) u ekstrakt klice p{enice. Posle inkubirawa, pod uslovima koji imitiraju uslove u }eliji, dobija se polipeptid odgovaraju}eg sastava. Ako se kao matrica upotrebi sinteti~ki polinukleotid sastavqen samo od uridinskih nukleotida (poli-U), dobija se polipeptid sastavqen samo od amino-kiseline fenilalanin (poli-Phe); ako se upotrebi poli-A, dobija se poli-Lys i sl. [ezdesetih godina pro{log veka nau~nici su upravo na ovaj na~in, koriste}i polinukleotide razli~itog sastava, uspeli da de{ifruju geneti~ki kod.
Kada se jedan od „stop-signala” (UAA, UAG ili UGA) na|e u A-mestu, za wega se ne vezuje tRNK, ve} tzv. osloba|aju}i protein. Tada se raskida veza izme|u tRNK i rastu}eg polipeptida u P-mestu i on se osloba|a u citoplazmu.
Pitawa i zadaci
Zaokru`ite ta~ne odgovore.
1.Koje su tvrdwe o geneti~kom kodu ta~ne:
a) šifru za jednu amino-kiselinu (tj. kodon) čine tri nukleotida.
b) genetički kod čine 64 kodona.
v) specifični kodoni označavaju terminaciju lanca.
g) jednoj amino-kiselini odgovara više kodona.
d) sinonimni kodoni su različite šifre za istu amino-kiselinu. đ) sve tvrdwe su tačne. e) nijedna tvrdwa nije tačna.
2.Izro|enost geneti~kog koda ogleda se u ~iwenici da svaka amino-kiselina mo`e da bude ode|ena:
a)samo jednim kodonom.
b)s više od jednog kodona.
v)s tačno tri kodona.
g)s više od tri kodona.
3. Koliko razli~itih kodona ima ulogu stop-kodona u translaciji: a) jedan, b) dva, v) tri, g) ~etiri.
4.Koja od navedenih tvrdwi nije ta~na? Translacija je proces: a) sinteze proteina, b) u kojem se prevodi geneti~ka {ifra sa jezika nukleotida na jezik amino-kiselina, v) koji se odvija u }elijskom jedru, g) koji se odvija u citoplazmi, na ribozomima, d) u kojem prevo|ewe geneti~ke poruke po~iwe od ta~no odre|enog mesta u iRNK –start-kodona,
|) u kojem u~estvuju ribozomi, iRNK, tRNK i veliki broj enzima, e) koji se zavr{ava na ta~no odre|enom mestu u iRNK – stop-kodonu.
5.U toku translacije amino-kiseline se ugra|uju u polipeptidni lanac onim redom koji je odre|en redosledom:
a) doga|aja u toku formirawa po~etnog translacionog kompleksa, b) kodona u iRNK, v) nukleotida u tRNK, g) vezivawa ribozomskih subjedinica za iRNK, d) ukqu~ivawa pojedinih enzima u proces.
6.Kqu~nu ulogu u prevo|ewu geneti~ke poruke, zapisane redosledom nukleotida u iRNK, imaju: a) male ribozomske subjedinice, b) velike ribozomske subjedinice, v) enzimi, g) tRNK, d) same iRNK, |) ni{ta od navedenog.
7.[ta je antikodon:
a) skup od tri nukleotida na jednom kraju molekula tRNK koji je komplementaran kodonu za odre|enu amino-kiselinu, b) deo iRNK od kojeg zapo~iwe prevo|ewe geneti~ke poruke, v) deo ribozoma koji specifi~no prepoznaje kodon za odre|enu amino-kiselinu, g) skup od tri nukleotida koji poni{tava zna~ewe kodona, d) skup od tri nukleotida koji ozna~ava kraj translacije?
8.Mesta na ribozomu za koja su u svakom trenutku tokom translacije vezane dve tRNK ozna~ena su kao: a) A-mesta, b) P-mesta, v) kodoni, g) A-mesto i P-mesto, d) antikodoni.
9.Posle svakog ciklusa doga|aja u toku translacije polipeptidni lanac je du`i za: a) jednu amino-kiselinu, b) dve amino-kiseline, v) tri amino-kiseline, g) ~etri amino-kiseline, d) dvadeset amino-kiselina, |) nekoliko stotina amino-kiselina.
10. Za stop-kodon se vezuje: a) tRNK, b) osloba|aju}i faktor, v) voda, g) velika ribozomska subjedinica, d) amino-kiselina metionin.
Biolozi su se oduvek pitali kako se iz jedne oplo|ene jajne }elije razvija slo`en vi{e}elijski organizam. Dosada{wa saznawa govore o tome da su diferencijacija i razvi}e organizama zasnovani na promenama u ekspresiji gena, pri ~emu se pod pojmom ekspresija gena podrazumeva sinteza funkcionalnog proteinskog proizvoda nekog gena. Ona je slo`enim i jo{ uvek nedovoqno rasvetqenim regulatornim mehanizmima usagla{ena s fiziolo{kim potrebama }elije, koje se mewaju u razli~itim fazama razvi}a i diferencijacije, kao i pod dejstvom razli~itih faktora unutra{we i spoqa{we sredine. Kada nau~ite {ta je ekspresija gena i kako je ona regulisana, jo{ boqe }ete razumeti geneti~ku kontrolu razvi}a, o kojoj ste u~ili ranije (poglavqe Nasle|ivawe biolo{kih osobina / Geneti~ka kontrola razvi}a)
gen Agen Bgen V
DNK
ekspresija gena
Transkripcija
Obrada primarnih transkripata
Transport iRNK u citoplazmu
Translacija
Posletranslacione modifikacije proteina
protein A protein B protein V
Ekspresija gena
U vi{e}elijskom organizmu }elije koje pripadaju razli~itim tkivima razlikuju se po gra|i i ulogama koje imaju. Sve }elije vi{e}elijskog organizma, me|utim, sadr`e iste gene, ali se razlikuju po tome {to sinteti{u razli~ite vrste proteina.
Zamislite da je genom klavijatura, a svaka dirka jedan gen. Sve }elije jednog vi{e}elijskog organizma poseduju istu klavijaturu, ali u svakom tkivu odraslog organizma svira se druga~ija melodija. Pored toga, i u istom tkivu melodija se mewa u razli~itim fazama razvi}a i diferencijacije, kao i pod dejstvom razli~itih faktora unutra{we i spoqa{we sredine.
Postavqa se pitawe kako se u }eliji reguli{e sinteza proteina. Ta regulacija je mogu}a na svim nivoima ekspresije gena, tj. prenosa geneti~ke informacije od DNK do proteina, tako da ukqu~uje mehanizme koji odre|uju: – kojom brzinom i kada }e se neki gen transkribovati, – na koji na~in }e se obraditi primarni transkript, tj. kombinovati egzoni, – koje zrele iRNK }e se transportovati iz jedra u citoplazmu,
– kojom brzinom }e se odvijati translacija, – koja od dostupnih iRNK }e u datim uslovima biti prevedena u protein, – kako }e i kada novosintetisani protein biti modifikovan da bi postao biolo{ki aktivan. Prvi i u mnogim slu~ajevima najva`niji regulatorni korak jeste kontrola transkripcije jer je sinteza razli~itih proteina u razli~itim tipovima }elija jednog organizma u ve}ini slu~ajeva posledica selektivne transkripcije gena.
U eukariotskim }elijama regulacija transkripcije zasniva se na interakcijama regulatornih proteina, tzv. transkripcionih faktora, sa regulatornim nizovima nukleotida u koje se ubrajaju promotori i poja~iva~i (poglavqe Transkripcija). Poja~iva~i su neophodni za punu aktivnost mnogih promotora. Naj~e{}e se nalaze uzvodno od gena, u okviru promotora, ali su ponekad udaqeni od wega i po nekoliko hiqada nukleotida. Kao rezultat specifi~ne interakcije poja~iva~a i transkripcionih faktora, dolazi do ubrzawa transkripcije odre|enog gena. Poseban tip poja~iva~a predstavqaju tzv. negativni poja~iva~i ili uti{iva~i, koji imaju suprotno dejstvo na transkripciju. U regulaciji transkripcije jednog gena mo`e da u~estvuje vi{e poja~iva~a/uti{iva~a, a za svaki od wih mo`e da se ve`e vi{e razli~itih transkripcionih faktora, ispoqavaju}i bilo stimulatorni, bilo inhibitorni efekat.
Kao što je već rečeno (poglavqe Transkripcija), za transkripciju svakog gena neophodno je da se prvo formira početni transkripcioni kompleks sastavqen od transkripcionih faktora koji pripadajuklasi osnovnih transkripcionih faktora, i enzima RNK polimeraze. Taj kompleks je odgovoran za bazalni (osnovni) nivo transkripcije gena. Me|utim, brzina transkripcije mnogih gena mewa se u razli~itim fazama razvi}a, kao i u razli~itim fiziolo{kim uslovima kako bi se koli~ina pojedinih proteina usaglasila s fiziolo{kim potrebama }elije. Pored toga, mnogi geni se transkribuju smo u nekim tkivima, ili samo u pojedinim fazama razvi}a i fiziolo{kim stawima. Za regulaciju transkripcije tih gena „zadu`eni“ su specifi~ni transkripcioni faktori koji su prisutni samo u nekim tkivima. Oni se vezuju za promotore i poja~iva~e gena ~iju transkripciju reguli{u, a potom ostvaruju kontakt sa osnovnim transkripcionim faktorima iz sastava po~etnog transkripcionog kompleksa. To dovodi do stimulacije ili inhibicije transkripcije na na~in koji jo{ uvek nije obja{wen. Vezivawe transkripcionih faktora za promotore i poja~iva~e je samo jedan, mada veoma zna~ajan vid regulacije transkripcije gena. Drugi va`an vid ove regulacije predstavqaju promene strukture hromatina, koje su preduslov za normalno odvijawe transkripcije. Da bi neki gen mogao da bude transkribovan, neophodno je da u oblasti tog gena do|e do „otvarawa hromatina“ kako bi RNK polimeraza i transkripcioni faktori mogli da pri}u promotoru. Me|u enzimima koji dovode do strukturnih promena hromatina najzna~ajniji su oni koji katalizuju hemijske modifikacije histona – proteina koji su odgovorni za odr`avawe strukture hromatina.
Odavno se smatra da diferencijacija i razvi}e nisu pra}eni niti gubitkom, niti umno`avawem gena. Savremeni eksperimenti klonirawa biqaka i `ivotiwa potvr|uju da jedro bilo koje diferencirane }elije sadr`i kompletan geneti~ki program za razvi}e i diferencijaciju celog organizma.
Slike ovce Doli, prve `ivotiwe klonirane iz diferencirane }elije odraslog organizma, obi{le
Doli – ovca koja nema tatu
su svet 1997. godine. Vilmut (Ian Wilmut) i wegovi saradnici izolovali su jedro iz }elije ko`e vimena jedne {estogodi{we ovce i preneli ga u izolovanu jajnu }eliju ~ije su jedro prethodno uklonili. Iz te jajne }elije, koja je uneta u matericu surogat–majke, razvila se Doli. Ona je verna kopija {estogodi{we ovce koja je bila davalac jedra.
DNK ~ipovi su staklene plo~ice sa hiqadama vezanih jednolan~anih DNK koje odgovaraju razli~itim genima. Wihovom primenom se istovremeno ispituje ekspresija vi{e od 10 000 gena. Na primer, DNK ~ip se mo`e koristiti za upore|ivawe ekspresije gena u normalnoj i malignoj }eliji. U tom ciqu prvo se izoluju iRNK iz dve populacije }elija. Na wima se reverznom (obrnutom) transkripcijom sinteti{u komplementarne jednolan~ane DNK i obele`e fluorescentnim bojama tako da sve DNK iz iste populacije }elija nose istu boju (npr. crveno – maligne }elije, `uto – normalne }elije). Zatim se ove DNK nanose na ~ip, gde se komplementarno sparuju s odgovaraju}im jednolan~anim DNK. Crvene ta~ke ozna~avaju gene koji se eksprimiraju samo u malignim }elijama, a `ute – oni koji se eksprimiraju samo u normalnim }elijama. Zelene ta~ke nastaju na mestima gena koji se podjednako eksprimiraju u obema populacijama }elija, a crna poqa ostaju na mestima onih gena koji se ne eksprimiraju ni u jednoj.
Obele`avawe
DNK fluorescentnim bojama
Ispitivawe ekspresije gena upotrebom DNK ~ipa.
Ekspresija mnogih eukariotskih gena kontrolisana je mehanizmimakoji stupaju na scenu posle transkripcije i mogu da imaju mawi ili ve}i uticaj na krajwi rezultat. A krajwi rezultat regulacije ekspresije gena jeste sinteza upravo onakvog skupa biolo{ki aktivnih proteina kakav je }eliji neophodan u odre|enim fiziolo{kim uslovima. Ekspresija mnogih eukariotskih gena regulisana je na vi{e na~ina i na vi{e nivoa. Glavna regulacija se obi~no odvija na nivou transkripcije, a regulatorni mehanizmi posle transkripcije imaju ulogu finog pode{avawa koncentracije funkcionalnog proteina u }eliji. U }elijama koje nemaju jedro, kao {to su eritrociti, su{tinski zna~aj ima regulacija translacije jer transkripcija u tim }elijama potpuno izostaje.
Dobar primer usaglašavawa ekspresije jednog gena (sinteze jednog proteina) s realnim potrebama ćelije pružaju eritrociti – visokodiferencirane ćelije čija je biosintetska aktivnost najvećim delom usmerena na sintezu hemoglobina. Sinteza globina, proteinskog dela hemoglobina, u ovim ćelijama je usklađena s količinom raspoloživog neproteinskog dela, hema. Mehanizam koji to obezbeđuje zasniva se na fosforilaciji jednog proteina, čija je uloga da započne translaciju vezivawemiRNK za ribozom. Kada se zalihehema potro{e, aktivira se enzim koji katalizuje fosforilaciju tog proteina. Fosforilisani protein je „zarobqen”, a translacija globinske iRNK se usporava ili zaustavqa. U obrnutom slu~aju, u prisustvu hema, enzim je neaktivan, protein defosforilisan, a translacija ubrzana. Na taj na~in }elija uvek sinteti{e ni mawe ni vi{e nego upravo onoliko globina koliko u odre|enim uslovima mo`e da iskoristi za „proizvodwu” hemoglobina.
Kada je sinteza polipeptida zavr{ena, to jo{ uvek ne zna~i da je on i biolo{ki aktivan. Bilo da }e postati deo neke }elijske strukture, bilo da }e se kao enzim ukqu~iti u neki od mno{tva metaboli~kih procesa u }eliji, novosintetisani polipeptid naj~e{}e mora da pretrpi jednu ili vi{e modifikacija kojima se prevodi u bilo{ki aktivan oblik. To je posledwi korak ekspresije gena. ^esta modifikacija je ograni~ena proteoliza, kojom se neaktivne prete~e proteina, tzv. proproteini, prevode u aktivne proteine tako {to im se uklawa deo polipeptidnog lanca. Takvoj obradi posle translacije podle`u, na primer, neaktivne prete~e proteoliti~kih enzima himotripsina i tripsina – himotripsinogen i tripsinogen.
Neki proteini sinteti{u se u obliku poliproteina – jednog polipeptidnog lanca koji sadr`i nekoliko proteina. Posle translacije, specifi~ne proteaze hidrolizuju odgovaraju}e peptidne veze, osloba|aju}i pojedine aktivne proteine. Posttranslaciona obrada poliproteina odvija se na na~in specifi~an za pojedina tkiva, uz u~e{}e specifi~nih proteaza.
Veliki broj polipeptidnih hormona sinteti{e se u obliku poliproteina, a tipi~an primer je proopiomelanokortin, poliprotein koji je proizvod jednog gena. Razli~itom obradom u predwem i sredwem re`wu hipofize od ovog poliproteina nastaje najmawe osam razli~itih polipeptidnih hormona me|u kojima su: adrenokortikotropni hormon (ACTH) i β-lipotropin u predwem re`wu hipofize, odnosno α, β i γ-melanostimuliraju}i hormon (MSH), γ-lipotropin, β-endorfin i metenkefalin u sredwem re`wu hipofize.
Poznato je, tako|e, vi{e od sto pedeset razli~itih kovalentnih modifikacija aminokiselina u sastavu proteina. Naj~e{}e modifikacije su: fosforilacija, acetilacija i glikozilacija. Fosforilacija proteina predstavqa univerzalan mehanizam kojim }elija brzo i efikasno odgovara na signale iz spoqa{we sredine, uskla|uju}i aktivnost mnogih enzima i drugih proteina (receptora, faktora rasta, transkripcionih faktora i sl.) sa trenutnim fiziolo{kim potrebama tkiva. Fosforilaciju proteina katalizuju enzimi proteinske kinaze, koji prenose fosfatnu grupu sa ATP na serinske, treoninske ili tirozinske ostatke u proteinu. U nekim slu~ajevima fosforilacijom se stimuli{e, a u nekim smawuje biolo{ka aktivnost proteina.
Geneti~ke informacije se ~uvaju u molekulima DNK kao poruke ispisane nukleotidima umesto slovima. Kroz generacije }elija one se prenose u neizmewenom obliku procesom replikacije DNK, koji uvek prethodi }elijskoj deobi. A kroz }eliju, iz jedra u citoplazmu, prenose se posredstvom iRNK koje nastaju „prepisivawem” (transkripcijom) gena. Gen je deo molekula DNK, tj. niz nukleotida koji predstavqa informaciju za sintezu jednog polipeptidnog lanca. Taj niz nukleotida ne mora biti kontinuiran. Po zavr{enoj transkripciji gena geneti~ke informacije se, u procesu translacije, „prevode” u redosled amino-kiselina u proteinima, i to je primarna struktura proteina. Proces translacije zasniva se, u stvari, na de{ifrovawu geneti~ke informacije koju nosi iRNK, uz po{tovawe skupa pravila koji se naziva geneti~ki kod. Od primarne strukture proteina, zavisi wihova prostorna struktura, a od prostorne strukture zavisi uloga proteina u }eliji. Kao realizatori naslednih informacija, proteini su odgovorni za odvijawe svih vitalnih procesa. Gra|a, metabolizam i uloga svake }elije zavise od proteina koji se u woj sinteti{u. ]elije koje pripadaju razli~itim tkivima razlikuju se upravo po skupu proteina koje poseduju.
Pitawa i zadaci
Zaokru`ite ta~ne odgovore.
1.Sve }elije jednog vi{e}elijskog organizma:
a) sadr`e isti genom,
b) sadr`e razli~ite genome, v) aktiviraju uvek isti genom, g) na isti na~in odgovaraju na spoqa{we signale, d) prolaze kroz iste stupweve razvi}a i diferencijacije.
2.]elije koje pripadaju razli~itim tkivima istog organizma razlikuju se po: a) genima koje sadr`e u svom genomu, b) strukturnoj organizaciji svojih genoma, v) proteinima koje sinteti{u, g) strukturi svojih organela, d) strukturi svojih membrana.
3.Ekspresija gena je ostvarena onda kada se zavr{i: a) wegova transkripcija, b) obrad primarnog transkripta tog gena, v) sinteza i posttranslaciona obrada odgovaraju}eg proteina, g) translacija iRNK koja je kopija tog gena, d) transport odgovaraju}e iRNK iz jedra u citoplazmu.
4.Ekspresija gena:
a) regulisana je u skladu sa trenutnim fiziolo{kim potrebama }elije, b) nije regulisana, v) odvija se u svakom trenutku na isti na~in i istim intenzitetom, g) nema zna~aja za diferencijaciju }elije, d) nema zna~aja za `ivot }elije.
5.Regulacija ekspresija eukariotskih gena obuhvata:
a) regulaciju transkripcije, b) regulaciju obrade primarnih transkripata, v) regulaciju transporta iRNK iz jedra u citoplazmu, g) regulaciju translacije, d) posttranslacionu regulaciju, |) sve navedeno.
6.Transkripcioni faktori: a) su regulatorni proteini, b) reguli{u transkripciju gena interakcijom sa promotorima, poja~iva~ima, i uti{iva~ima, v) u~estvuju uformirawu po~etnog transkripcionog kompleksa, g) su proteini koji se vezuju za DNK, d) sve navedeno je ta~no, |) ni{ta od navedenog nije ta~no.
7.Kod eukariota regulatorni protein mo`e da inhibira transkripciju nekog gena interakcijom sa: a) histonom, b) hromatinom, v) uti{iva~em, g) poja~iva~em, d) intronom, |) egzonom.
8.Fosforilacija proteina i ograni~ena proteoliza su primeri: a) regulacije obrade primarnog transkripta, b) translacione regulacije, v) posttranslacione regulacije, g) transkripcione regulacije, d) svega navedenog.
Molekularna biotehnologija, popularno nazvana geneti~ko in`ewerstvo, predstavqa novu tehnologiju koja se razvila tokom posledwih nekoliko decenija na osnovu saznawa do kojih su do{le molekularna genetika, biohemija i mikrobiologija. To je tehnologija koja omogu}uje da se modifikuje geneti~ka osnova }elija i organizama manipulisawem pojedina~nim genima. Tehnike geneti~kog in`ewerstva, primewene u nau~nim istra`ivawima, pru`aju mogu}nost da se detaqnije upozna molekularna osnova slo`enih biolo{kih pojava kao {to su rast, razvi}e, diferencijacija, imunolo{ki odgovor, }elijska deoba, }elijska smrt, onkogeneza, kognitivni procesi itd. Ali, osim {to omogu}uju ogroman napredak u upoznavawu `ivota, one pru`aju ~oveku i mogu}nost da ga mewa. Ove tehnike imaju {iroku primenu ne samo u nau~nim istra`ivawima ve} i u drugim oblastima qudske delatnosti, kao {to su medicina, veterina, farmacija, poqoprivreda, {umarstvo, industrija i za{tita `ivotne sredine, tako da u velikoj meri mogu da uti~i na poboq{awe kvaliteta `ivota qudi.
Geneti~ko in`ewerstvo obuhvata niz tehnika pomo}u kojih se mo`e manipulisati delovima hromozomske DNK ili pojedina~nim genima u ciqu ispitivawa i mewawa wihove strukture, prou~avawa mehanizama kojima se reguli{e ekspresija gena, upoznavawa strukture i uloge wihovih proteinskih proizvoda itd. Tehnike koje se koriste za izolovawe pojedinih gena iz hromozoma i za wihovo umno`avawe da bi se dobio veliki broj gotovo identi~nih kopija poznate su pod nazivom klonirawe DNK. Ina~e, pod pojmom klonirawa podrazumeva se proces dobijawa identi~nih kopija ~itavih organizama, }elija, molekula DNK ili delova molekula DNK.
Klonirawe jednog fragmenta DNK, a to je naj~e{}e jedan gen ili deo gena koji vodi poreklo od bilo koje prokariotske ili eukariotske }elije, obuhvata niz slede}ih postupaka. Prvo se iz molekula DNK ise~e `eqeni deo (gen ili deo gena). U tu svrhu koriste se restrikcioni enzimi. To su enzimi od kojih svaki specifi~no prepoznaje odre|ene kratke nizove nukleoti-
Komplementarno sparivawe plazmida i ispitivnog gena presecawe plazmidne DNK
Plazmid (molekul DNK sa sposobno{}u samostalne replikacije u bakterijskoj }eliji)
Gen koji `elimo da kloniramo
Klonirawe DNK
Hibridni molekul DNK koji se unosi u }eliju doma}ina
da u DNK, i preseca oba lanca DNK ta~no na onim mestima na kojima se ti nizovi nalaze. Potom se dobijeni fragment DNK ugradi u vektor za klonirawe, tj. molekul DNK koji ima sposobnost replikacije. Kao vektori koriste se plazmidi (mali, kru`ni molekuli DNK prisutni u bakterijskim }elijama u kojima se replikuju nezavisno od genomske DNK), ili virusni genomi, kao {to je, na primer, genom bakteriofaga λ. Dobijeni hibridni ili rekombinovani molekul DNK unosi se u }eliju–doma}ina, ~iji }e enzimi obezbediti wegovu replikaciju, a time i umno`avawe ispitivanog fragmenta DNK. Kao }elije–doma}ini naj~e{}e se koriste bakterije ili }elije kvasca zato {to se brzo dele, ali to mogu da budu i mnoge druge eukariotske }elije. Na kraju se veliki broj kopija ispitivanog fragmenta DNK izoluje iz }elija–doma}ina.
Tehnike za određivawe redosleda nukleotida u molekulima DNK usavršene su i automatizovane, tako da je za relativno kratko vreme moguće odrediti primarnu strukturu bilo kog molekula DNK. Automatizacija je omogućila i to da se za relativno kratko vreme upozna primarna struktura čitavih genoma različitih vrsta, ukqučujući i čoveka, te da se o strukturnoj organizaciji genoma saznamnogo vi{e nego {to se do sada znalo. Koli~ine DNK potrebne za ovakvu analizu mogu se dobiti ili klonirawem, ili metodom lan~ane polimerazne reakcije, koja predstavqa brz, jednostavan i automatizovan na~in za umno`avawe fragmenata DNK bilo kog porekla.
Tehnike geneti~kog in`ewerstva {iroko se primewuju u nau~nim istra`ivawima. One, na primer, za razliku od klasi~nih biohemijskih metoda, omogu}uju ispitivawe strukture i uloge onih proteina koji se u tkivima nalaze u veoma niskim koncentracijama. To je va`no zato {to je broj takvih proteina veliki, a mnogi od wih imaju zna~ajne, naj~e{}e regulatorne uloge. U tu svrhu primewuje se postupak kojim se bakterijska ili }elija kvasca „primora” da sinteti{e velike koli~ine ispitivanog proteina. Sli~an postupak se koristi i kada se tehnikama geneti~kog in`ewerstva u }elijama–doma}ina proizvode velike koli~ine proteina koji se koriste u medicini i veterini, a ~ija je proizvodwa primenom drugih metoda nemogu}a ili neekonomi~na. Na taj na~in su proizvedeni proteini kao {to su humani insulin, hormon rasta, interferon i dr.
Prvi protein proizveden primenom genetičkog inžewerstva bio je insulin – hormon neophodan qudima koji boluju od šećerne bolesti. Proizvela ga je prva biotehnološka kompanija Xenentek (Genentech) još 1982. godine.
Ono {to je donedavno bilo mogu}e uraditi samo sa bakterijama i }elijama kvasca, danas je mogu}e uraditi i s biqnim i `ivotiwskim }elijama. Uspe{no uno{ewe stranih gena u biqne }elije omogu}ilo je veliki napredak u poqoprivredi – proizvodwu kultura koje imaju ve}u hranqivu vrednost i daju ve}e prinose, kao i onih koje su otporne na insekticide, herbicide, biqne bolesti, nepovoqne klimatske uslove, su{u itd.
Mogu}nost da se i u genom `ivotiwskih }elija unesu strani molekuli DNK danas se uveliko koristi. Zahvaquju}i tome posti`e se ogroman napredak kada je re~ o upoznavawu strukture i funkcije gena i genoma, embriogeneze i uzroka nastajawa malignih i mnogih drugih bolesti, a otvaraju se i nove perspektive za terapiju i le~ewe naslednih bolesti genskom terapijom
Supermi{
Prva `ivotiwa u ~iji genom je ugra|en strani gen (transgena `ivotiwa) bio je „supermi{” – mi{ koji je porastao skoro dvostruko vi{e od svojih srodnika zahvaquju}i tome {to je u svom genomu nosio gen za hormon rasta pacova. Palmiter (Palmiter) i wegovi saradnici su 1982. godine pomo}u cev~ice mikroskopskog promera direktno unosili klonirani gen za hormon rasta pacova u oplo|ene jajne }elije mi{a. Zigoti koji su pre`iveli tu manipulaciju uno{eni su zatim u materice `enki mi{a. Iz 170 takvih zigota razvio se 21 mi{. Samo 7 od tih mi{eva nosilo je strani gen u svom genomu, a samo jedan ga je preneo i na polovinu svog potomstva.
^im se pokazalo da se strana DNK mo`e direktno uneti u genom }elije `ivotiwa, pojavila se ideja genske terapije – zamene mutiranog gena koji uzrokuje neku bolest normalnim genom. Prvi put je 1990. godine taj postupak primewen na jednoj ~etvorogodi{woj devoj~ici koja je bolovala od te{ke imunolo{ke bolesti nastale zbog odsustva jednog enzima. Iz krvi te devoj~ice izolovane su bele krvne }elije. U wihov genom je, potom, uz pomo} virusa ugra|ena „ispravna” verzija gena za nedostaju}i enzim. Kada su te }elije vra}ene u krvotok devoj~ice, do{lo je do sinteze odgovaraju}eg enzima. Mada je ovaj uspeh pobudio veliku pa`wu i nadu da }e na sli~an na~in biti mogu}e le~ewe i mnogih drugih naslednih bolesti, zbog brojnih tehni~kih i eti~kih problema s primenom genske terapije jo{ uvek se nije daleko odmaklo.
Pod pretpostavkom da }e u bliskoj budu}nosti biti re{eni tehni~ki problemi koji komplikuju gensku terapiju, postavqa se pitawe koliki su stvarni dometi takvog na~ina le~ewa i koje su mogu}e posledice. Naime, od genske terapije se ne mo`e o~ekivati le~ewe svih, ve} jedino onih naslednih bolesti koje su uslovqene promenama u samo jednom genu (tzv. monogenskih bolesti). Takvih bolesti ima nekoliko hiqada. Najve}i broj naslednih bolesti, me|utim, predstavqa rezultat slo`enih me|udejstava ve}eg broja geneti~kih i sredinskih ~inilaca i tu se od genske terapije, na`alost, ne mo`e mnogo o~ekivati.
Primena molekularne biotehnologije povezana je s nizom eti~kih, pravnih, ekolo{kih i drugih problema. Ova mo}na tehnologija dovodi do revolucionarnih promena, naro~ito u medicini i poqoprivredi.
Mogu}nost le~ewa qudi genskom terapijom otvara mnoga eti~ka pitawa. Kada se genska terapija primewuje na telesne }elije ~oveka, eti~ki problemi su sli~ni onima na koje se nailazi prilikom transplantacija organa. Me|utim, kad su u pitawu polne }elije, geneti~ke promene izazvane genskom terapijom prenose se na potomstvo, pa su tada eti~ki problemi mnogo ozbiqniji.
Ako se imaju u vidu eksperimenti sa sisarima ~iji je na~in reprodukcije i embrionalnog razvi}a vrlo sli~an ~ovekovom, nije te{ko zamisliti sli~ne eksperimente i s oplo|enim jajnim }elijama qudi. Danas se prili~no uspe{no obavqaju razli~ite manipulacije, kao {to je vantelesno za~e}e, koje su preduslov za sli~ne eksperimente na qudima. Istorija je, me|utim, puna primera grubih zloupotreba rezultata nau~nih istra`ivawa. U Nema~koj je za vreme Tre}eg rajha, u ime selekcije „superiornih genotipova”, bilo prinudno sterilisano oko 200 000 osoba ozna~enih kao „geneti~ki nepodobne”, a milioni Jevreja, Roma, Slovena i pripadnika drugih naroda su ubijeni.
Poseban problem predstavqa mogu}nost proizvodwe geneti~ki modifikovanih biqaka namewenih za ishranu qudi. Postoji izvesna zabrinutost za zdravqe qudi koji koriste takvu hranu, a treba voditi ra~una i o mogu}em uticaju transgenih biqnih kultura na `ivotnu sredinu.
Savremeni geneti~ari, filozofi i politi~ari poku{avaju da defini{u zajedni~ke eti~ke principe kojih bi se trebalo pridr`avati prilikom primene molekularne biotehnologije. Oni se sla`u s tim da je neophodno prvo dobro upoznati strukturu i na~ine funkcionisawa gena i genoma kako bi primena geneti~kog in`ewerstva bila odgovorna u odnosu na ~ove~anstvo i celokupnu na{u planetu.
Zaokru`ite ta~ne odgovore.
1.Kako se nazivaju enzimi koji prepoznaju specifi~ne nizove nukleotida u DNK i presecaju oba lanca DNK na specifi~nim mestima: a) proteaze, b) polimeraze, v) restrikcioni enzimi, g) ligaze, d) kinaze.
2. U geneti~kom in`ewerstvu vektor je: a) }elija–doma}in, b) nosa~ fragmenta DNK koji treba da bude kloniran, v) kopija segmenta DNK, g) specifi~an fragment DNK.
3.Dva tipa vektora za klonirawe su:
a) restrikcioni enzimi i ligaze, b) replikoni i splajsozomi, v) }elije–doma}ini i donorske }elije, g) plazmidi i virusi, d) polimeraze i kinaze.
4.Kada se fragment DNK ugradi u vektor za klonirawe, nastaje: a) klon organizma, b) lan~ana polimerazna reakcija, v) rekombinovani ili hibridni molekul DNK, g) }elija–doma}in, d) DNK klon.
5.Lan~ana polimerazna reakcija je metod za:
a) umno`avawe fragmenata DNK bez vektora i }elija–doma}ina, b) klonirawe celih organizama, v) se~ewe i spajawe molekula DNK, g) formirawe genomske biblioteke, d) umno`avawe }elija.
6.Sekvencirawe DNK je metod za: a) ugra|ivawe ispitivanog fragmenta DNK u vektor, b) formirawe genomske biblioteke, v) odre|ivawe redosleda nukleotida u molekulu DNK, g) klonirawe fragmenata DNK, d) ispitivawe uloge regulatornih nizova nukleotida.
7.Kako se naziva organizam u ~iji genom je ugra|en strani gen: a) hibridni organizam, b) mutant, v) transgeni organizam, g) rekombinant, d) klon?
8.Jedan od ciqeva biotehnologije je da se: a) razviju novi na~ini dobijawa proizvoda korisnih qudima, b) qudska bi}a zamene robotima, v) naprave qudski mutanti, g) smawi potreba qudi za biqkama i `ivotiwama, d) pove}a broj qudi na Zemqi.
9.Genska terapija je postupak: a) koji pokazuje da geni nisu odgovorni za bolesti qudi, b) koji se u budu}nosti koristi za le~ewe nekih bolesti qudi, v) koji se nikada ne}e primeniti na qudima, g) kojim se poku{alo le~ewe qudi, ali je definitivno odba~en, d) koji nikada nije primewen na qudima.
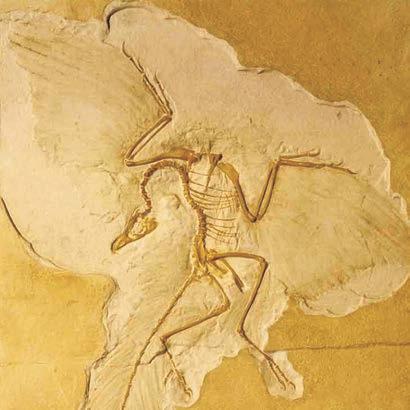
Pojam evolucija se koristi u svakodnevnom `ivotu na razli~ite na~ine i ima razli~ita zna~ewa. Otuda su mogu}i nesporazumi, kao i pogre{na upotreba tog termina. U biologiji se govori o evoluciji `ivog sveta. [ta se pod tim podrazumeva?
Evolucija je proces promena u populacijama koje prevazilaze `ivotni vek jedinke. To su promene u geneti~kom materijalu koje se nasle|uju kroz generacije.
@iva bi}a se kroz generacije mewaju, a te promene zahvataju razli~ite aspekte: izgled, fiziologiju, pona{awe ... . U osnovi promena `ivog sveta kroz vreme nalaze se geneti~ke promene u populacijama, koje su u slo`enim odnosima sa sredinom.
^esto se smatra da su te promene vrlo spore i dugotrajne, pa se postavqaju slede}a pitawa. Mo`e li se evolucija posmatrati? Da li je neko video nastanak nove vrste? Da li je bilo dovoqno vremena za evoluciju?
Procesi evolucionih promena odvijaju se svuda oko nas. Za neke od wih potrebno je mnogo vremena, a neke se de{avaju prili~no brzo. Tako se kod bakterija (koje kratko `ive, a brojnost populacija im je velika) razvila otpornost na razli~ite antibiotike. To je naro~ito izra`eno kod bolni~kih sojeva izlo`enih visokim koncentracijama raznovrsnih antibiotika, pa pre`ivqavaju samo najotporniji i sti~u vi{estruku otpornost.
Jedan od primera je porast u~estalosti tuberkuloze u svetu, koja je pre toga bila vrlo retka, bar u razvijenim zemqama. To je posledica pojave sojeva izaziva~a tuberkuloze otpornih na antibiotike koji se ina~e koriste za le~ewe ove bolesti. Zato je va`na du`ina terapije. Naime, pacijent koji prestane da uzima lekove pre vremena ostavqa u `ivotu otpornije bakterije i time, u stvari, vr{i selekciju za pove}anu otpornost na taj antibiotik.
Mnoge vrste su se prilagodile prisustvu ve{ta~kih materija koje je ~ovek tek nedavno stvorio. Insekti i korovske biqke razvijaju otpornost prema insekticidima i herbicidima. Poznat primer za to je DDT, jedan od prvih i najpoznatijih insekticida koji je pre vi{e decenija kori{}en kao vrlo efikasno sredstvo protiv insekata. Me|utim, za kratko vreme wegova efikasnost je opala – muve, malari~ni komarci, a kasnije i mnogi drugi insekti postali su otporni.
U biologiji se pojam evolucija koristi i u zna~ewu evolucione istorije (filogenije) neke grupe – na primer kada se govori o evoluciji kowa ili evoluciji primata.
Zadivquju}a raznolikost boja i oblika miliona vrsta koje naseqavaju na{u planetu, beskrajna raznovrsnost wihove gra|e i na~ina `ivota, navode nas na pitawe: Za{to postoji tolika raznovrsnost `ivog sveta? A opet, postoji i znatna sli~nost: zajedni~ki geneti~ki kod, isti osnovni biohemijski procesi, molekularni tragovi zajedni~kog porekla. Za{to postoji takva sli~nost? Za{to i kako je nastao, kao {to je Darvin napisao, „...od jednog tako jednostavnog po~etka beskrajan broj najlep{ih i naj~udesnijih formi...”? Na ta pitawa odgovara evoluciona biologija.
Realnost evolucije potvr|uje veliki broj podataka iz paleontologije, uporedne anatomije, biologije razvi}a, biogeografije, molekularne biologije.
Fosili, okameweni ostaci bi}a koja su nekada `ivela, pru`aju nam neposredne podatke o evoluciji. Oni svedo~e o postojawu i izgledu velikog broja i{~ezlih vrsta, o promenama u `ivotnoj sredini i zajednicama `ivih bi}a koje su se veoma razlikovale od dana{wih. U vreme kada se smatralo da se vrste uop{te ne mewaju i ne izumiru, otkri}e fosilnih ostataka vrsta koje vi{e ne postoje utrlo je put prihvatawu ideje o promenqivosti.
Fosili omogu}uju ne samo da rekonstrui{emo izgled organizama koji su davno izumrli ve} i da do|emo do podataka o brzini evolucije, uzrocima izumirawa, kao i o prelaznim formama izme|u velikih grupa organizama – recimo, izme|u gmizavaca i ptica.
Jedan od najzanimqivijih primera prelaznih formi odnosi se na kitove. Dana{wi kitovi postali su od kopnenih predaka. Tokom posledwe dve decenije otkriveno je vi{e fosila koji pokazuju na koji se na~in to odvijalo. Predak kitova je bila, sada izumrla, grupa ~etvorono`nih kopnenih sisara sa neobi~no velikim glavama. Neki wihovi potomci prilagodili su se plivawu u plitkim morima, ali su i daqe imali sva ~etiri ekstremiteta i mogli da se kre}u po kopnu. Jo{ kasnije forme potpuno su se prilagodile `ivotu u okeanu: predwi udovi su im bili u obliku peraja, a zadwi zakr`qali.
Fosil arheopteriksa – praptice.
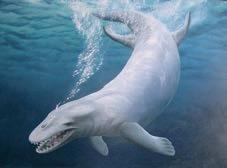
Jedan od predaka
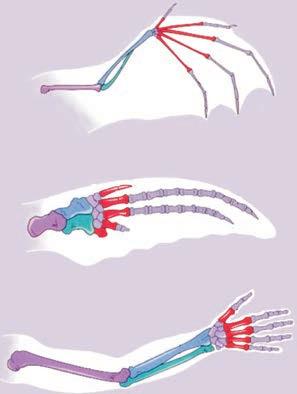
Krilo slepog mi{a, peraje kita i qudska ruka razli~ito izgledaju, ali su istog porekla.
Niz podataka o evoluciji mo`e se dobiti iz uporednoanatomskih analiza savremenih organizama. Tu se mo`e uo~iti prilago|avawe razli~itim zahtevima sredine i razli~itim funkcijama. Tako qudska ruka, peraje kita i krilo slepog mi{a razli~ito izgledaju, ali su istog porekla. Nastali su od iste strukture zajedni~kog pretka, koja je vremenom kod potoma~kih grupa modifikovana za razli~ite funkcije. Isto tako, listovi biqaka mogu biti promeweni na razli~ite na~ine – recimo, u bodqe kod kaktusa. Osobine koje vode poreklo od iste strukture zajedni~kog pretka nazivaju se homologije S druge strane, u `ivom svetu postoji niz primera za strukture koje su sli~nog izgleda i funkcije, ali razli~itog porekla. Na primer, i krila insekata i krila ptica slu`e za
ziva konvergentna evolucija. U najpoznatije primere konvergentne evolucije spadaju kaktusi i neke mle~ike, kod kojih je velika sli~nost u izgledu rezultat prilago|avawa `ivotu u vrlo su{nim uslovima. Me|u pravim i torbarskim sisarima tako|e postoji, ~itav niz vrsta sli~nih i po izgledu i po na~inu `ivota: mi{ i torbarski mi{ ili krtica i torbarska krtica.
Koale su karakteristi~ne za Australiju
letewe, ali nastaju od razli~itih struktura. Kod biqaka, za{titnu ulogu imaju bodqe koje nastaju od listova, kao kod kaktusa, i trnovi koji nastaju od stabla, kao kod trwine. Takve osobine nazivaju se analogije Navedeni primeri pokazuju da se i mawe srodni organizmi mogu na sli~an na~in prilagoditi zahtevima sredine. To se na-
Biogeografija je nauka koja se bavi geografskim rasprostrawewem `ivih bi}a. Za{to kenguri `ive u Australiji? Za{to ne `ive svuda gde za wih postoje odgovaraju}i uslovi? Dana{we rasprostrawewe `ivog sveta na Zemqi mo`e se objasniti samo u kontekstu evolucije. Vrste koje naseqavaju udaqene oblasti odvojene su preprekama koje ih spre~avaju da do|u u dodir. Zato evoluiraju nezavisno, pa su me|u regionima koji su vrlo dugo odvojeni i razlike u `ivom svetu velike. To je uo~io jo{ Darvin (str. 137) sakupqaju}i uzorke vrsta u razli~itim delovima sveta – recimo, i `ivi i fosilni organizmi u Ju`noj Americi znatno su se razlikovali od evropskih. Primetio je, tako|e, da su vrste na okeanskim ostrvima sli~ne onima s najbli`eg kontinenta, a da ne li~e na vrste sa ostrva u udaqenim delovima sveta.
Oblasti koje su dugo bile izolovane odlikuju se jedinstvenim `ivim svetom. Najboqi primer za to je Australija. Izolovana milionima godina od drugih kontinenata, sa~uvala je brojne i raznovrsne grupe torbara, dok su ih na drugim mestima zamenili pravi sisari, koji su se kasnije pojavili.
Biologija razvi}a, naro~ito na molekularnom nivou, mo`e da pru`i mnogo podataka o evoluciji. Sli~nosti u razvi}u ukazuju na zajedni~ko poreklo.
Na primer, sve grupe
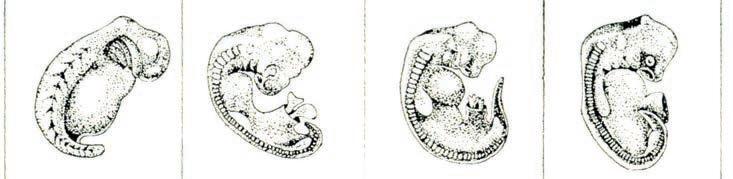
Sli~nost embrionalnog razvi}a razli~itih grupa ki~mewaka (prikazani su embrioni vodozemca, ptice i dva sisara).
ki~mewaka imaju sli~no embrionalno razvi}e (iako kao odrasle jedinke izgledaju vrlo razli~ito), {to ukazuje na to da poti~u od zajedni~kog pretka.
U novije vreme mnogo se radi u oblasti genetike razvi}a. Kod razli~itih `ivotiwa razvi}e kontroli{u iste grupe gena, {to pokazuje da one imaju zajedni~ku evolucionu istoriju. Velike evolucione promene ~esto su rezultat mutacija ba{ u genima koji reguli{u razvi}e, {to mo`e da dovede do modifikacije osnovnog plana gra|e tela. Tako se odsustvo nogu kod zmija obja{wava time {to je kod wihovih predaka do{lo do mutacija gena koji reguli{u formirawe ekstremiteta (a te mutacije su se pokazale korisnim za wihov na~in `ivota).
Sli~nosti i razlike na molekularnom nivou pru`aju dokaze o evolucionim odnosima razli~itih grupa organizama. Tako nam ~iwenica da `iva bi}a imaju isti geneti~ki kod ukazuje na wihovo zajedni~ko poreklo.
Rekonstrukcija preda~ko-potoma~kih odnosa posledwih decenija sve vi{e se izvodi na osnovu molekularnih, a ne samo na osnovu morfolo{kih i fosilnih podataka. Pore|ewe sastava odre|enog molekula koji ima istu (ili vrlo sli~nu) funkciju kod razli~itih grupa organizama mo`e poslu`iti da se odrede filogenetski odnosi izme|u tih grupa. Tako se, na primer, citohrom s (ce), protein neophodan za aerobno disawe, sre}e i kod bakterija, i kod mu{ica, i kod qudi, {to zna~i da se pojavio kod nekog vrlo davnog zajedni~kog pretka. Razlike u wegovom sastavu poti~u od mutacija koje su se nakupile tokom duge evolucije posle odvajawa. Sli~nosti i razlike u redosledu nukleotida u DNK i RNK ili amino-kiselina u proteinima pokazuju koliko su vrste srodne (sli~nost je ve}a kod srodnijih vrsta) i koliko je vremena proteklo od razdvajawa dve vrste ({to je ve}i broj razlika, vrste su du`e bile razdvojene).
Evoluciona biologija neraskidivi je deo sistema biolo{kih nauka. Povezana je s mnogim drugim naukama i daje prakti~an doprinos u nizu oblasti koje su vrlo zna~ajne za ~oveka.
Zdravqe, bolest i moderna medicinska praksa sve vi{e se razmatraju u evolucionom kontekstu. Evoluciona biologija su{tinski je povezana s nizom medicinskih problema. Da pomenemo samo neke primere: evolucija virulencije i otpornosti (recimo, otpornost bakterija na antibiotike), brzina evolucije virusa (kao {to su virus gripa ili HIV), zajedni~ka evolucija parazita i doma}ina, promene imunog sistema, evolucioni zna~aj infektivnih bolesti itd. (O modernoj DNK tehnologiji i wenom uticaju ve} je bilo re~i.)
Poznavawe evolucionih mehanizama neophodno je za re{avawe mnogih problema u ovoj oblasti, kao {to su procena efekata ve{ta~ke selekcije, zna~aj geneti~ke varijabilnosti,
evolucija odnosa patogen – doma}in, evolucija otpornosti prema hemikalijama kod patogena, pove}awe otpornosti gajenih vrsta i sli~no. (Ve} smo govorili o ogromnom zna~aju o~uvawa geneti~ke varijabilnosti i opasnostima od gajewa geneti~ki jednoobraznih useva.)
Prou~avawe evolucije otpornosti tako|e je dovelo do saznawa zna~ajnih za poqoprivredu – recimo, da se isti pesticid ili fungicid ne sme koristiti du`e vreme na istoj povr{ini, u velikim koli~inama, niti na velikim povr{inama i da veliki zna~aj ima kori{}ewe prirodnih neprijateqa umesto hemikalija, kao i pove}awe otpornosti gajenih vrsta.
^ovekova aktivnost, koja izaziva ogromne promene u `ivotnoj sredini, neminovno uti~e na evoluciju `ivog sveta. Negativni uticaji ogledaju se u ugro`avawu velikog broja vrsta i pove}anoj stopi izumirawa, {to je posledica naru{avawa ili uni{tavawa stani{ta, zaga|ewa sredine i sl.
Ogromno pove}awe brojnosti i sve ve}e rasprostrawewe svetskog stanovni{tva naro~ito su uo~qivi od polovine XX veka. Godine 1950. na Zemqi je bilo oko dve i pô milijarde stanovnika, danas ih ima više od sedam milijardi, a procewuje seda }e 2100. godine brojka dosti}i dvadeset milijardi. To dovodi do velikih pritisaka na sredinu – zbog potrebe za sve ve}im koli~inama hrane i vode, sirovina i energije, kao i zbog rastu}eg zaga|ewa i proizvodwe ogromnih koli~ina otpada.
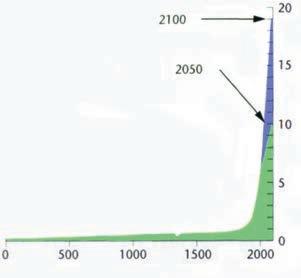
broj stanovnika u milijardama
S druge strane, preduzimaju se i broj ne aktivnosti da bi se za{titile ugro`ene i retke vrste, o~uvala geneti~ka varijabilnost, za{titila sredina i oporavila naru{ena stani{ta. Posebna pa`wa poklawa se vrstama koje mogu da opstanu na zaga|enim stani{tima (evoluciji otpornosti prema opasnim materijama). Razne vrste trava su otporne na te{ke metale i mogu da rastu u neposrednoj blizini rudnika i jalovi{ta. Neki mikroorganizmi sposobni su da razgra|uju opasne materije, {to je vrlo bitno za oporavak zaga|enih stani{ta. Poznavawe evolucionih mehanizama neophodno je i za procenu mogu}ih posledica u slu~ajevima kada se uvode nove, strane vrste ili geneti~ki modifikovani organizmi ({to je danas vrlo aktuelan problem).
Kada se ka`e evolucija ili teorija evolucije, obi~no se pomisli na ^arlsa Darvina. Mada wegovo ime svi povezuju s evolucijom `ivog sveta, ideje o tome postojale su i mnogo ranije. Ipak, prva teorija evolucije pojavila se tek u XIX veku. Teorija evolucije obja{wava procese evolucionih promena, odnosno mehanizme koji do toga dovode.
Francuski prirodwak Lamark dao je 1809. godine prvu teoriju evolucije. Prou~avaju}i fosilne meku{ce i upore|uju}i ih sa `ivima, do{ao je do zakqu~ka da se vrste mewaju i izumiru i poku{ao da objasni taj proces. Smatrao je da postoji uro|ena te`wa `ivog sveta ka pove}awu slo`enosti, a da je tip promene odre|en uslovima sredine i potrebama organizma. Lamark je primetio da se `iva bi}a prilago|avaju sredini, mewaju}i se kada se sredina mewa. U tome va`nu ulogu ima pona{awe – upotreba jednih organa ili neupotreba drugih dovodi do morfolo{kih promena, a one se nasle|uju u potomstvu. On je zastupao ideju, kasnije potpuno odba~enu, o nasle|ivawu ste~enih osobina, tj. da se osobine koje jedinka stekne tokom `ivota prenose na weno potomstvo.
To se popularno ilustruje na primeru `irafa. Za{to `irafe imaju duga~ke vratove? Lamarkisti~ko obja{wewe bilo bi slede}e: po{to su `irafe brstile li{}e s drve}a, bilo ga je sve mawe na ni`im granama, pa su one morale da iste`u vratove kako bi dohvatile li{}e s vi{ih grana. Intenzivno kori{}ewe vratnih mi{i}a dovelo je do izdu`ewa vrata, {to se nasle|ivalo u potomstvu. Rezultat ovog procesa, koji se ponavqao tokom mnogih generacija, jesu duga~ki vratovi dana{wih `irafa.
Iako Lamark nije bio u pravu u nekim delovima svoje teorije (uro|ena te`wa ka sve ve}oj slo`enosti, nasle|ivawe ste~enih osobina), ostaje nesporan wegov veliki doprinos kao autora prve celovite teorije evolucije.
^arls Darvin je ro|en 1809. godine u Engleskoj. Kada je imao {esnaest godina, zapo~eo je studije medicine, a zatim pre{ao na teologiju. Me|utim, najvi{e je bio zainteresovan za prou~avawe `ivog sveta.
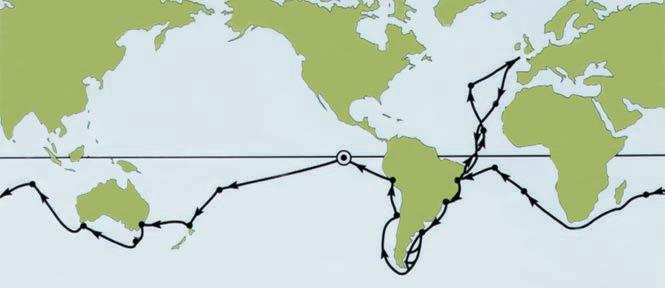
Brod „Bigl“ oplovio je svet tokom petogodi{weg putovawa (kru`i}em su obele`ena Galapagoska ostrva).
^arls Darvin (1809–1882)
Kao mlad prirodwak Darvin se ukrcao na brod „Bigl” i tokom petogodi{we plovidbe oko sveta (1831–1836) sakupio je i opisao ogroman broj uzoraka razli~itih vrsta. Prou~avao je `ivotiwe, biqke, fosile i geolo{ke formacije. Na wega je izuzetno sna`an utisak ostavilo bogatstvo `ivog sveta u tropima, brojni fosili krupnih `ivotiwa koje je prona{ao u Ju`noj Americi i, vi{e od svega, `ivi svet Galapagoskih ostrva.
Galapagoska ostrva predstavqaju arhipelag vulkanskog porekla koji se nalazi na ekvatoru, oko 1000 km udaqen od ju`noameri~kog kopna. Nazvana su po xinovskim korwa~ama koje tu `ive. O izgledu Galapagosa svedo~i zapis u Darvinovom dnevniku:
„Na prvi pogled ni{ta nije moglo biti mawe privla~no od tog ostrva ... ispucalo poqe crne bazaltne lave izba~ene u najhrapavijim naborima ...“
Ostrva se odlikuju vulkanskim kraterima, oskudnom vegetacijom, ali i neobi~nim, raznovrsnim `ivotiwskim svetom koji je odu{evio Darvina (morske i kopnene iguane, xinovske kopnene korwa~e, razne vrste ptica).
Sakupqaju}i uzorke `ivog sveta sa Galapagosa, Darvin je zapazio wihovu sli~nost sa ju`noameri~kim vrstama, ali i razlike izme|u jedinki sa pojedinih ostrva. Na primer, xinovske korwa~e sa razli~itih ostrva razlikovale su se po obliku oklopa i du`ini vrata – u zavisnosti od visine biqaka kojima su se hranile. Ipak, najvi{e razlika uo~io je u grupi ptica koje su kasnije postale poznate kao Darvinove zebe.
Na ostrvima `ivi vi{e vrsta zeba koje poti~u od predaka sa ju`noameri~kog kopna. Uglavnom su sli~ne veli~ine i boje, a upadqivo se razlikuju po veli~ini i obliku kquna. To se obja{wava time {to su se, tokom mnogih generacija, prilagodile na razli~itu hranu: neke vrste se hrane krupnim i tvrdim semenom, neke sitnijim semewem, krupnim insektima i gusenicama ili sitnim insektima koje izvla~e iz pukotina.
Zapa`awa sa Galapagoskih ostrva bila su od velikog zna~aja za kasnije formulisawe teorije evolucije. Sve do po~etka XIX veka preovladavalo je mi{qewe da se vrste ne mewaju i ne izumiru. Po povratku s putovawa Darvin se, podstaknut onim {to je uo~io, posvetio upravo pitawu promenqivosti vrsta. Dugi niz godina je, strpqivo i savesno, sakupqao podatke. Wegovo kapitalno delo Postanak vrsta, u kome je izlo`io svoju teoriju, pojavilo se 1859. godine.
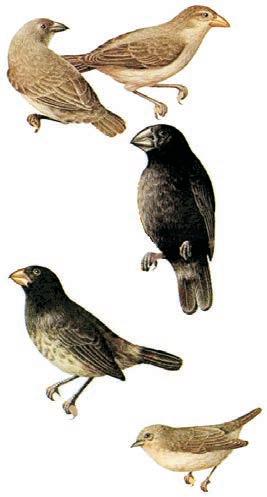
Darvinove zebe se upadqivo razlikuju po veli~ini i obliku kquna.
Osnovne teze u Postanku vrsta su slede}e: da su svi organizmi nastali od zajedni~kog pretka putem „porekla s modifikacijama” i da je glavni mehanizam tih modifikacija delovawe prirodne selekcije na naslednu varijabilnost.
Darvin je sakupioiz najrazli~itijih izvora (fosili, geografska rasprostrawenost vrsta, uporedna anatomija i embriologija, ve{ta~ka selekcija) veliku koli~inu podataka koji su potvr|ivali realnost evolucije. Pored toga, ponudio je i odgovaraju}e obja{wewe, odnosno mehanizam evolucionih promena – prirodnu selekciju.
Prou~avaju}i promenqivost vrsta, Darvin je od uzgajiva~a dobio mnogo podataka o razli~itim varijetetima `ivotiwa i biqaka. Bio je impresioniran promenama osobina do kojih je dovodila ve{ta~ka selekcija (str. 67) i smatrao je da se sli~an proces odabirawa odvija i u prirodi. Pored toga, na wega je uticalo i zapa`awe o velikom reproduktivnom potencijalu: vrste imaju sposobnost da proizvedu mnogo vi{e potomaka nego {to mo`e da ihpre`ivi i dostigne polnu zrelost. Na primer, prose~na `enka bakalara polo`i oko dva
miliona jaja po sezoni, od kojih 99% strada ve} u toku prvog meseca `ivota. A, prema prora~unima, kad bi svi potencijalni potomci jednog para mi{eva pre`iveli, Zemqa bi za kratko vreme bila preplavqena mi{evima.
S druge strane, postoje ograni~ewa u pogledu dostupnih koli~ina hrane, vode, svetlosti, prostora itd. Kao posledica toga, dolazi do suparni{tva – kompeticije – izme|u jedinki. Po{to ima vi{e jedinki nego {to sredina mo`e da izdr`i, ne}e sve do`iveti da ostave potomke. A po{to jedinke u populacijama nisu iste, neke }e u toj borbi za opstanak pro}i boqe od drugih. Jedinke koje poseduju najpovoqnije osobine za odre|enu sredinu ima}e najve}e {anse za pre`ivqavawe i razmno`avawe.
Prirodna selekcija predstavqa uspe{nije pre`ivqavawe i reprodukciju nekih geneti~kih varijanata u odnosu na druge, u uslovima sredine kakvi vladaju u odre|enom vremenu. Kao rezultat prirodne selekcije, populacije se mewaju kroz generacije.
Veliki Darvinov doprinos ogleda se i u na~inu na koji je shvatao varijabilnost me|u jedinkama iste vrste: ne kao znak nesavr{enosti ili gre{ke, ve} kao materijal od kojeg prirodna selekcija mo`e da oblikuje boqe prilago|ene (adaptirane) forme. U ve} pomenutom primeru sa `irafama Darvinovo tuma~ewe je bilo da su se preci `irafa razlikovali po du`ini vratova. U uslovima nesta{ice hrane, `irafe sa malo du`im vratom od ostalih imale su prednost – pre`ivqavale su i ostavqale potomstvo, koje je nasle|ivalo istu osobinu. Da bi prirodna selekcija delovala, varijabilnost mora da bude nasledna
Retko je koja nau~na teorija imala toliki uticaj i do te mere promenila na~in razmi{qawa i poimawe `ivog sveta kao Darvinova teorija evolucije. Iako ideja o evoluciji nije izvorno Darvinova, on je prikupio veliki broj tako ~vrstih dokaza iz razli~itih nau~nih disciplina da je izazvao burnu reakciju u javnosti (o toj reakciji govori i ~iwenica da je kompletan tira` Postanka vrsta rasprodat istoga dana kada se pojavio) i ubedio ogromnu ve}inu istaknutih nau~nika u realnost evolucije. Kasnije, u XX veku, {iroko je prihva}ena i prirodna selekcija. Spremnost da se suo~i s problemima i kritikama svoje teorije pokazao je razmatraju}i ih u kasnijim izdawima Postanka vrsta. Darvinov rad ozna~io je ne samo prekretnicu u nauci XIX stole}a ve} je i postavio temeqe savremenoj teoriji evolucije.
Jedan od osnovnih elemenata Darvinove teorije evolucije jeste nasledna varijabilnost. Darvin je uo~io wen zna~aj, ali nije znao pravi mehanizam nasle|ivawa iako je bio Mendelov savremenik. Tek kada je nau~na zajednica otkrila Mendelove radove, do{lo je do napretka u ovoj oblasti.
Osnove savremene teorije evolucije postavqene su tokom tridesetih i ~etrdesetih godina XX veka. Principi moderne genetike kombinovani su sa Darvinovim tuma~ewem evolucije putem prirodne selekcije, a istra`ivawa usmerena na populacije i wihovu geneti~ku strukturu.
Za savremenu teoriju evolucije ne mo`e se re}i da ima jednog autora, niti jednu godinu u kojoj je formulisana. Ona je rezultat rada velikog broja nau~nika u razli~itim oblastima –od matemati~ke populacione genetike do molekularne biologije. U obja{wavawu evolucionih procesa, raznovrsnosti `ivih bi}a i wihove prilago|enosti najrazli~itijim sredinama i na~inima `ivota koristi se slo`en pristup zasnovan na sintezi velikog broja razli~itih biolo{kih i nebiolo{kih disciplina.
Evoluciju smo definisali na osnovu geneti~kih promena u populacijama. Sada }emo razmotriti mehanizme koji dovode do tih promena.
Mutacije (str.57) izuzetno su va`ne za evoluciju kao glavni izvor geneti~ke varijabilnosti u populacijama. Bez toga se ne bi moglo govoriti o evolucionim promenama, o prilago|avawu ili postanku vrsta.
Mutacijama nastaju nove geneti~ke varijante i time se obezbe|uje varijabilnost, „sirov materijal” na koji zatim mo`e da deluje prirodna selekcija. Na primer, razli~ite varijante boje tela mogu da nastanu kao rezultat mutacija, a neka od wih }e u odre|enoj sredini omogu}iti boqe pre`ivqavawe od ostalih (npr. zato {to se boqe uklapa u okolinu). Ili, recimo, neka od mnogobrojnih mutacija koje uti~u na razli~ite enzime kod insekata mo`e da omogu}i pove}awe otpornosti prema insekticidima.
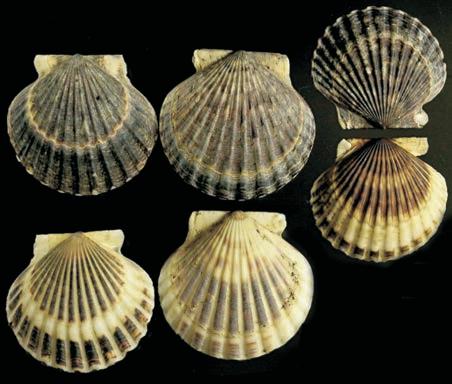
Razli~ite varijante boje qu{ture nastaju kao rezultat mutacija.
Va`no je napomenuti da se mutacije ne de{avaju zato da bi organizam bio prilago|en odre|enoj sredini. Mutacije se jednostavno de{avaju, a ukoliko se posmatra wihov efekat, one mogu da budu korisne ili {tetne – u zavisnosti od toga kako uti~u na pre`ivqavawe i reprodukciju. Ako nemaju uticaja, tj. prirodna selekcija ih „ne razlikuje”, ka`emo da su neutralne
O stopama mutacija, tj. u~estalosti pojave mutacija na odre|enom genu ve} je bilo re~i. Iz navedenih primera se vidi da je mutacija na pojedina~nom genu prili~no redak doga|aj. Zna~i, kada bi mutacije bile jedini evolucioni mehanizam, dovodile bi do vrlo malih, sporih promena u u~estalosti alela. Me|utim, u prirodi deluju i drugi evolucioni mehanizmi. Tako se u~estalost korisnih mutacija pove}ava jer wihovi nosioci mogu da ostave ve}i broj potomaka. [tetne mutacije prirodna selekcija elimini{e iz populacija. One se ipak odr`avaju, u malim u~estalostima, jer se proces mutacija i daqe odvija.
Promene u~estalosti genskih alela u populacijama mogu biti i rezultat slu~ajnosti. To se naziva geneti~ki drift. Kako ovaj evolucioni mehanizam uti~e na geneti~ku strukturu populacija? Kroz generacije dolazi do slu~ajnih, nasumi~nih promena u u~estalostima alela. To mo`e da se zavr{i potpunim gubitkom jednog od alela, odnosno smawewem varijabilnosti. Ako neki redak alel poseduje samo nekoliko jedinki u populaciji, mo`e se desiti da on ne bude prenet u slede}u generaciju.
Te slu~ajne promene su naro~ito izra`ene u populacijama male brojnosti. U prirodi ima mnogo takvih primera, kao {to su populacije ugro`enih vrsta ili one koje kolonizuju nova stani{ta. Smawewe geneti~ke varijabilnosti ~ini ugro`ene vrste jo{ osetqivijim i ugro`enijim. Mnoge populacije s vremena na vreme prolaze kroz fazu naglog i velikog smawewa brojnosti, recimo usled o{tre zime ili bolesti, {to mo`e da dovede do znatnih promena wihove geneti~ke strukture.
Naglo i veliko smawewe brojnosti populacije mo`e bitno da promeni wenu geneti~ku strukturu.
Kada geni pre|u iz jedne populacije u drugu i postanu deo wenog genskog fonda (str. 64), to se naziva protok gena. On se ostvaruje kretawem jedinki ili, kod biqaka, preno{ewem polena i semena. Razmenom gena populacije postaju sli~nije po svojoj geneti~koj strukturi. S druge strane, ako ne{to ometa protok gena, populacije }e biti sve razli~itije. Recimo, ulice i putevi predstavqaju veliku prepreku za lokalne populacije `aba ili pu`eva, a populacije kopnenih `ivotiwa na razli~itim okeanskim ostrvima diferenciraju se jer ne mogu da razmewuju gene.
Ovo je i jedan od na~ina da se u populaciji pojave novi geni, kojih ranije nije bilo. Tako se ve} pomenuta otpornost prema insekticidima u po~etku pojavila kod malog broja populacija insekata, ali se zatim brzo pro{irila, naro~ito kod vrsta kao {to su komarci i muve.
se ostvariti i preno{ewem
Protok gena mewa postoje}e u~estalosti alela. Veli~ina promene zavisi od toga koliki je protok gena (koliko je jedinki prispelo u novu populaciju i tu ostavilo potomke) i kolike su geneti~ke razlike izme|u dve populacije.
Ve} je obja{weno na koji je na~in Darvin do{ao do ideje o prirodnoj selekciji kao osnovnom mehanizmu evolucije. Prirodna selekcija predstavqa uspe{nije pre`ivqavawe i reprodukciju nekih geneti~kih varijanata u odnosu na druge u odre|enim uslovima sredine. Dakle, prirodna selekcija deluje kada postoje razli~ite geneti~ke varijante, koje se razlikuju po adaptivnoj vrednosti, tj. po tome koliko, preko svojih potomaka, doprinose genskom fondu slede}e generacije. Za forme koje vi{e doprinose (imaju ve}u adaptivnu vrednost) ka`emo da prirodna selekcija deluje u wihovu korist. Zato se wihova u~estalost u populacijama pove}ava.
Na razli~ito pre`ivqavawe, odnosno reprodukciju uti~u mnoge osobine – otpornost prema bolestima, sposobnost izbegavawa predatora, plodnost itd. Svaka nasledna osobina koja svojim nosiocima omogu}uje da ostave ve}i broj potomaka nego oni koji tu osobinu nemaju naziva se adaptacija. Razli~ite osobine mogu da budu adaptacije –morfolo{ke, biohemijske, osobine pona{awa ... Takve primere mo`emo na}i svuda u `ivom svetu. Recimo, otpornost prema insekticidima posti`e se na razli~ite na~ine – prisustvom enzima koji razgra|uju insekticid ili odre|enim pona{awem, izbegavawem zapra{enih zona.
Neki sisari mogu da rone do velikih dubina i dugo ostanu pod vodom zahvaquju}i nizu fiziolo{kih i anatomskih adaptacija.
Evolucione novine su slo`ene adaptacije, odnosno sistemi adaptacija – kqu~ne osobine koje bitno mewaju odnos organizama i sredine. To su, na primer, endotermija (koja predstavqa bitnu promenu u odnosu na prethodno postoje}u ektotermiju) ili pojava jajeta ({to je kopnenim ki~mewacima omogu}ilo da se razmno`avaju van vodene sredine). Pojava spora i posebnih tipova }elija, tako|e su kqu~ne adaptacije koje su omogu}ile prvim kopnenim biqkama da osvoje suvozemnu sredinu (str. 158).
Svetla i tamna forma no}nog leptira u nezaga|enoj sredini, na kori drveta obrasloj li{ajevima.
Delovawem prirodne selekcije populacije se mewaju kroz generacije. Jedan od najboqih primera za to mo`e se na}i kod vi{e vrsta no}nih leptira. Pojava je poznata kao industrijski melanizam jer je u pitawu porast brojnosti tamnih (melani~nih) formi u odnosu na svetle u zaga|enim, industrijalizovanim sredinama. Pojava je prvi put opisana kod jedne vrste (Biston betularia) ~iji su se pripadnici odlikovali svetlom bojom tela, koja im je pru`ala odli~nu kamufla`u na kori drve}a obrasloj li{ajima. Me|utim, usled pove}awa zaga|enosti li{aji su i{~ezli, a kora potamnela od ~a|i. Na tako tamnoj podlozi svetli leptiri su postali vrlo uo~qivi i lak plen za ptice, dok su tamne forme pre`ivqavale mnogo boqe. To je dovelo do velikog porasta u~estalosti tamnih formi.
Va`no je napomenuti da, iako smo ove evolucione mehanizme razmatrali pojedina~no, oni u prirodi deluju zajedno. Recimo, za prirodnu selekciju neophodna je varijabilnost, a wen izvor su mutacije i rekombinacije. [tetne mutacije se odr`avaju u populacijama usled ravnote`e izme|u procesa mutacija koji ih proizvodi i selekcije koja ih odstrawuje iz populacija. Promene koje se uo~avaju u geneti~koj strukturi populacija rezultat su zbirnog efekta delovawa vi{e mehanizama.
Svetla i tamna forma no}nog leptira u zaga|enoj sredini, na kori drveta pocrneloj od ~a|i.
Kada selekcija deluje na kvantitativnu osobinu, raspodela vrednosti te osobine (str. 51) mewa se na razli~ite na~ine.
U nekim slu~ajevima selekcija favorizuje jedinke koje su na jednom kraju (ekstremu) raspodele. Do toga dolazi kada se sredina mewa u odre|enom smeru tokom vremena. Na primer, ako je osobina koju pratimo veli~ina tela, a krupnije telo donosi prednost u datoj sredini, selekcija }e favorizovati najkrupnije jedinke i one }e biti sve zastupqenije u populaciji. Kao rezultat toga mewa}e se raspodela osobine tako {to }e se pomerati ka sve ve}im vrednostima i prose~na veli~ina tela bi}e sve ve}a. Ovakva selekcija naziva se direkciona
Tako je kod Darvinovih zeba na Galapagosu do{lo do selekcije za krupnije telo i ve}i kqun, posle su{e koja je dovela do promene u ishrani. Insekti i sitno seme postali su vrlo retki, a krupno, tvrdo seme bilo je najdostupniji izvor hrane. U tim uslovima boqe su pre`ivqavale krupnije ptice sa sna`nijim kqunovima. I ve{ta~ko odabirawe (str. 67) na~e{}e je ovakvog tipa, {to pokazuju primeri koje smo naveli (selekcija za ve}i prinos p{enice, ve}u koli~inu mleka ili broj jaja itd.).
Kada je populacija dobro prilago|ena, a uslovi stabilni, selekcija deluje u korist jedinki sa sredwim vrednostima osobine, a protiv onih sa ekstremnim. Takva selekcija naziva se stabilizaciona. Dugo vremena je selekcija na ovakav na~in delovala na te`inu dece pri ro|ewu: pre`ivqavawe je bilo najve}e u grupi dece sa prose~nom te`inom, dok je stopa smrtnosti bila ve}a kod dece sa ekstremnom (premalom ili prevelikom) te`inom. Nekada je sredina takva da su ekstremni fenotipovi dobro prilago|eni, a prose~ni –lo{e. Tada selekcija favorizuje istovremeno jedinke koje se nalaze na oba kraja raspodele, tj. deluje disruptivno, a rezultat toga je razdvajawe dve grupe jedinki unutar populacije. Na primer, jedna vrsta insekata ima zelenu boju tela, sa prelazima od svetlo do tamnozelene. Na travi i listopadnom drve}u favorizovane su svetlozelene jedinke, a na ~etinarima – tamnozelene. Jedinke sa „sredwom” bojom tela nisu dobro kamuflirane ni u jednoj od sredina, pa lak{e postaju plen, odnosno ka`emo da ih prirodna selekcija elimini{e.
Nijedna vrsta ne `ivi sama, izolovana od ostalih. Svaka stupa u interakcije sa velikim brojem drugih vrsta, na koje uti~e i koje na wu uti~u. Ako su dve vrste u tako bliskim interakcijama da postaju sve vi{e adaptirane jedna na drugu, re~ je o koevoluciji. Koevolucija je zajedni~ka, me|uzavisna evolucija dve vrste koje uti~u jedna na drugu i mewaju se u skladu s tim. Ovaj termin prvi put je upotrebqen da bi se opisali me|usobni odnosi biqaka i biqojedih insekata, ali postoje i mnogi drugi primeri takvih interakcija.
Biqke i `ivotiwe koje ih opra{uju su, jo{ od vremena pojave prvih cvetnica, u takvim bliskim, me|uzavisnim odnosima, pa su uticale jedne na druge u pogledu evolucije morfolo{kih i drugih osobina. Tokom vremena biqke su razvile niz osobina privla~nih za opra{iva~e: upadqivu boju krunica, jak miris, nektar (koji ima visoku hranqivu vrednost) itd. Opra{iva~i su tako|e koevoluirali: kod wih uo~avamo specijalizovane delove tela (kao {to su dugi, zakrivqeni kqunovi ptica koje se hrane nektarom, ~ekiwe na telu insekata na koje se hvata polen) i specijalizovane na~ine pona{awa.
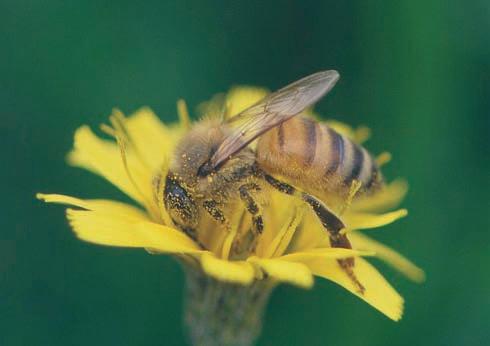
Cvetovi i opra{iva~i
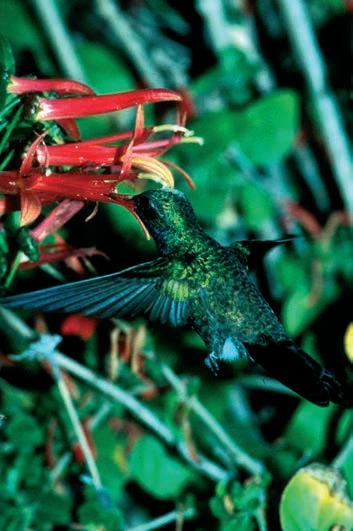
Insekti i ptice, koji spadaju u najva`nije opra{iva~e, ne vide boje na isti na~in. Osim toga, ptice nemaju naro~ito razvijeno ~ulo mirisa. Kao rezultat koevolucije, cvetovi koje opra{uju insekti su naj~e{}e `uti i plavi, ~esto jakog mirisa, dok su oni koje opra{uju ptice naranxasti ili crveni i bez mirisa. I slepi mi{evi imaju zna~ajnu ulogu u opra{ivawu nekih biqaka – cvetovi tih biqaka se otvaraju no}u i intenzivno miri{u.
Jedna od najva`nijih interakcija u prirodi jeste ona izme|u predatora i plena. Predator mora da bude uspe{an u hvatawu plena, a plen uspe{an u izbegavawu predatora. Strategije predatora su razli~ite – zasnovane su, na primer, na brzini, saradwi ~lanova grupe ili
kamufla`noj obojenosti (strategije zasede ili privla~ewa plena). Tako pojedine vrste riba, koje `ive u velikim dubinama, imaju fosforescentne mamce kojima privla~e plen. Orke, poznate i kao „kitovi-ubice”, imaju vrlo efikasnu strategiju lova na krupan plen (morske sisare i ribe) – love u grupama, ispoqavaju}i visok stepen saradwe i koordinacije.
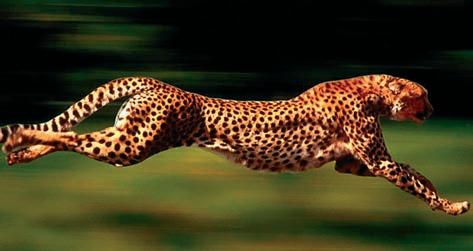
Predator mo`e da koristi brzinu ili kamufla`u
Odbrambene osobine plena mogu biti: brzina, mehani~ka odbrana (bodqe, oklopi i sl.), za{titna obojenost, prisustvo hemijskih materija koje plen ~ine otrovnim ili bar nejestivim itd. Kod mnogih `ivotiwa (dobar primer su ju`noameri~ke otrovne `abe) postoji tzv. opomiwu}a obojenost – upadqive boje i {are koje upozoravaju potencijalne predatore na otrovnost plena.
Predator vr{i sna`an evolucioni pritisak na plen, a on razvija odbrambene mere i time sa svoje strane vr{i sna`an evolucioni pritisak na predatora, pa se obe vrste mewaju. Tako dolazi do svojevrsne evolucione „trke u naoru`awu”.
Biqke ne mogu da pobegnu, ali poseduju razli~ite adaptacije koje ih {tite od biqojeda: bodqe, trnove, tvrde ko`aste listove ili, pak, hemijsku odbranu – razli~ite hemijske materije koje ih ~ine nesvarqivim ili otrovnim.
Aktivni sastojci nekih biqaka deluju na funkciju nervnog sistema, mi{i}a, jetre ili bubrega `ivotiwa koje ih konzumiraju. Ti sastojci su korisni za ~oveka jer mo`e da ih upotrebi kao prirodna sredstva za borbu protiv vi{e stotina vrsta {teto~ina biqnih kultura. Na primer, nikotin iz duvana je efikasan insekticid.
S druge strane, pojedine grupe insekata razvijaju otpornost prema biqnim toksinima, odnosno sposobnost wihove razgradwe. Svaki put kada se pojavi novi mehanizam razgradwe otrovnih sastojaka, novi izvori hrane postaju dostupni – sve biqke koje koriste tu hemikaliju kao za{titu. Vremenom dolazi do pove}awa raznovrsnosti u grupi insekata koji tu hranu koriste i, kao odgovor, do pojave efikasnijih na~ina odbrane biqaka i pove}awa wihove raznovrsnosti. Niz takvih primera opisan je kod leptira. Tako se leptiri jednog roda, dok su
na stupwu gusenice, hrane odre|enom grupom biqaka; uspe{no su se prilagodili na wihove alkaloide, koji su ina~e otrovni za ostale insekte. Kao odgovor, kod biqaka su se pojavile razli~ite tvorevine (kukasti izra{taji i sl.) koje ometaju polagawe jaja ili kretawe gusenica.
Bitno je napomenuti da nove strategije ne nastaju ciqano. Nove osobine javqaju se slu~ajno, kao rezultat geneti~kih promena, a u populaciji opstaju samo one koje su se pokazale kao uspe{ne, odnosno koje su omogu}ile svojim nosiocima da pre`ive i ostave potomstvo.
Riba-klovn me|u pipcima morske sase
U veoma va`ne i {iroko rasprostrawene interakcije me|u vrstama spada i simbioza (u prevodu –„zajedni~ki `ivot”), koja podrazumeva blizak kontakt izme|u dve vrste. U prirodi postoje hiqade razli~itih simbiotskih odnosa. Po{to se pojam „simbioza” defini{e i upotrebqava na razli~ite na~ine, ovde }emo ga koristiti u zna~ewu bliske asocijacije izme|u dve vrste koja donosi koristi bar jednoj od wih.
Udru`ivawe mo`e da bude korisno za obe strane (i uobi~ajeno je da se pod simbiozom u u`em smislu podrazumeva upravo takav odnos). Recimo, li{ajevi su rezultat simbioze alge i gqive. Azotofiksiraju}e bakterije `ive u kvr`icama na korenu nekih biqaka i snabdevaju ih neophodnim azotom, a biqke te bakterije snabdevaju neophodnim organskim molekulima. Riba-klovn `ivi me|u pipcima morske sase koji su otrovni za ve}inu drugih riba. Time je za{ti}ena, a tu pola`e i jaja, na bezbednom mestu. S druge strane, ona {titi sasu odbijaju}i one vrste riba koje se sasom hrane jer su imune na wen otrov.
U nekim slu~ajevima udru`ivawe je korisno za jednu, a neutralno za drugu vrstu, koja nema ni naro~ite koristi, ni {tete. Na primer, u tropskim {umama mawe biqke, kao {to su orhideje, `ive pri~vr{}ene na granama drve}a, visoko iznad zemqe, i time ostvaruju mnogo povoqnije uslove za `ivot (vi{e svetlosti, vlage i sl.).
Paraziti `ive na ili u telu doma}ina
Od velikog broja interakcija koje su korisne za jednu, a {tetne za drugu vrstu naro~ito su zna~ajne interakcije parazit–doma}in. Parazit `ivi na ili u telu doma}ina i ta asocijacija parazitu donosi korist, a doma}inu {tetu. Paraziti retko direktno izazivaju smrt doma}ina. Naj~e{}e ih oslabe i time u~ine podlo`nim predatorima ili razli~itim vrstama stresa. Parazitizam se pokazao kao uspe{an na~in `ivota. Procewuje se da je broj parazitskih vrsta ogroman.
Na Zemqi postoje milioni vrsta. Biolozi procewuju da ih ima oko osam miliona, od čega je do sada opisanooko 1750 000. Pre nego {to razmotrimo kako su sve te vrste nastale, moramo razjasniti {ta su, u stvari, biolo{ke vrste. Kako da odredimo koje jedinke pripadaju istoj vrsti, a koje razli~itim? Iz svakodnevnog iskustva znamo da postoji veliki broj razli~itih vrsta i da mo`emo da ih prepoznamo i razgrani~imo: ma~ka se razlikuje od psa, lav od tigra itd. Pri tom se oslawamo pre svega na spoqa{wu sli~nost. Me|utim, kao {to }emo videti, problem razgrani~ewa vrsta je mnogo slo`eniji.
Prirodwaci su vekovima klasifikovali organizme u vrste na osnovu sli~nosti. Vrste su posmatrali kao grupe sli~nih jedinki koje su odvojene od drugih grupa jasnim razlikama. Naj~e{}e se radilo o sli~nom izgledu – morfolo{koj sli~nosti
Pre pojave Darvinove teorije mislilo se da su vrste jasno odvojene i nepromenqive, a da je varijabilnost unutar svake vrste vrlo mala. Me|utim, problem s ovakvim pristupom sastoji se u tome {to je varijabilnost unutar vrsta velika: jedinke se ~esto znatno razlikuju u pogledu odre|enih osobina. Osim toga, kod mnogih vrsta postoje upadqive razlike u izgledu `enki i mu`jaka ili, pak, izme|u pojedinih uzrasnih stupweva. Zato se ranije de{avalo da se pripadnici iste vrste, mu`jaci i `enke ili mladi i odrasli, pogre{no smatraju pripadnicima razli~itih vrsta. S druge strane, ima mnogo primera organizama koji sli~no izgledaju, a pripadaju razli~itim vrstama, ponekad i prili~no nesrodnim.
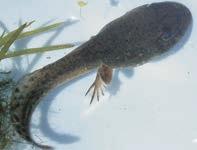
To pokazuje da sama sli~nost nije dovoqan kriterijum. Sli~nost ne mora obavezno da podrazumeva srodnost (tj. pripadnost istoj vrsti). Mora da postoji jo{ ne{to, ne{to {to Upadqive razlike u izgledu izme|u jedinki razli~itog pola ili uzrasta postoje kod mnogih vrsta.
le`i u osnovi te sli~nosti u izgledu i {to mo`e da se koristi kao biolo{ki kriterijum pripadnosti vrsti – reprodukcija, odnosno mogu}nost razmene gena.
Prema ovoj biolo{koj definiciji, vrsta se sastoji od jedne ili vi{e populacija ~iji su ~lanovi sposobni da se me|usobno ukr{taju, daju}i plodno potomstvo, a reproduktivno su izolovani od ~lanova drugih grupa. Drugim re~ima, postoje reproduktivne barijere koje spre~avaju geneti~ko me{awe s drugim vrstama.
Me|utim, ni ovakav pristup se ne mo`e primeniti uvek. Kod organizama koji se bespolno razmno`avaju ne mo`e se govoriti o me|usobnom ukr{tawu; kod izumrlih organizama, koji su nam poznati iz fosilnih nalaza, ne mo`e se proveriti da li je bilo reproduktivne izolacije. Zato se pri odre|ivawu vrsta uzimaju u obzir i drugi kriterijumi, odnosno razlike u nizu drugih osobina – ekolo{kih, morfolo{kih i dr.
Postanak nove vrste naziva se specijacija (lat. species – vrsta). Kako su milioni vrsta koje danas postoje, ili su postojale u pro{losti, nastali od preda~kih vrsta? Kqu~ni doga|aj je uspostavqawe reproduktivne izolacije.
Mehanizmi reproduktivne izolacije su biolo{ki mehanizmi koji spre~avaju ukr{tawe pripadnika razli~itih vrsta. Oni ~uvaju geneti~ku celovitost vrste, spre~avaju}i protok gena izme|u razli~itih vrsta. Postoji vi{e tipova izolacionih mehanizama, koji se razlikuju i po vremenu kada deluju – pre ili posle oplo|ewa.
Preoplodni mehanizmi spre~avaju da uop{te do|e do oplo|ewa. Oni ukqu~uju razmno`avawe u razli~ito vreme, razli~ita stani{ta, razlike u pona{awu ili u gra|i reproduktivnih organa, kao i biohemijsko „neslagawe” gameta.
Neke biqne vrste izolovane su time {to cvetaju u razli~ito vreme.
Tako su, recimo, mnoge vrste izolovane time {to se parewe (ili cvetawe) odvijaju u razli~ito vreme. Pripadnici nekih srodnih vrsta se ne sre}u jer `ive na razli~itim stani{tima. Kod `ivotiwa se izolacija ~esto zasniva na razlikama u pona{awu pri slo`enim ri tualima udvarawa. Detaqi udvaraju}eg pona{awa otkrivaju da li partneri pripadaju istoj vrsti (ogla{avawe karakteristi~no za vrstu postoji kod mnogih ptica i `aba, slo`ene „svadbene igre” kod nekih vodozemaca, insekata itd.). Kod nekih biqnih
vrsta izolacija se zasniva na razlikama u gra|i cveta, zbog ~ega ih opra{uju razli~ite vrste insekata.
Postoplodni mehanizmi deluju posle oplo|ewa. Protok gena spre~en je time {to se ne formira plodno potomstvo. Hibrid mo`e ili da ugine na ranom stupwu embrionalnog razvi}a ili da pre`ivi do polne zrelosti, ali bez mogu}nosti da ostavi potomstvo (sterilan je). U prvom slu~aju hibridni embrion ugine jer je interakcija roditeqskih gena takva da ne obezbe|uje normalno razvi}e ({to se de{ava pri ukr{tawu ovaca i koza). U drugom slu~aju hibridi su zdravi i sna`ni, ali nisu u stawu da se razmno`avaju (poznati primeri su mazge i mule). Naj~e{}i uzrok tome su problemi s formirawem gameta, naro~ito ako se roditeqske vrste razlikuju u broju hromozoma.
Postanak vrsta jedan je od najva`nijih evolucionih doga|aja. Vrste mogu da nastanu na razli~ite na~ine – u zavisnosti od toga kako se grupa jedinki odvaja od ostatka vrste i kako se prekida protok gena izme|u wih.
Naj~e{}i na~in je da se vrsta podeli na grupe jedinki koje su razdvojene u prostoru. Ovo se naziva alopatri~ka specijacija ( allos –drugi, razli~it, patria – domovina) ili geografska specijacija jer se zasniva na ulozi geografskih barijera u podeli populacija i spre~avawu protoka gena. Te geografske prepreke mogu da budu reke, okeani, planine, pustiwe i sl. Procesi kao {to su kretawe gle~era, pomerawe re~nih tokova, spajawe i razdvajawe kontine-
nata, izdizawe planina dovodili su tokom geolo{ke istorije Zemqe do toga da se populacije iste vrste razdvoje i ostanu na razli~itim stranama prepreke. U na{im krajevima, recimo, nadirawe leda tokom ledenih doba uticalo je na odvajawe populacija mnogih vrsta.
Izolovane populacije moraju da se prilagode uslovima u razli~itim sredinama. Glavnu ulogu u tome ima prirodna selekcija. Razli~iti selekcioni pritisci, mutacije, slu~ajne promene i odsustvo protoka gena dovode do toga da populacije vremenom postaju sve razli~itije po svojoj geneti~koj strukturi. Kada ponovo do|u u dodir, ne mogu vi{e uspe{no da se ukr{taju. Drugim re~ima, reproduktivno su izolovane – predstavqaju odvojene vrste.
ostrva
Odli~an primer takvih procesa jeste specijacija na ostrvima, naro~ito okeanskim, izolovanim i udaqenim od kontinenta. Darvinove zebe pokazuju kako u slu~aju arhipelaga, gde ima vi{e ostrva, mo`e da nastane vi{e vrsta jer se naseqavawe ostrva i prilago|avawe lokalnim uslovima ponavqaju vi{e puta.
Geografska izolacija nije uvek neophodna za nastanak vrsta. Nova vrsta mo`e da se pojavi na istoj teritoriji kao i roditeqska, tj. da se odvoji od roditeqske vrste reproduktivno, ali ne i prostorno. To se naziva simpatri~ka specijacija (lat. sym – zajedno).
Kako se prekida protok gena izme|u grupa jedinki koje i daqe `ive na istom mestu? Obi~no se to de{ava zahvaquju}i hromozomskim promenama, a naj~e{}i na~in zasniva se na poliploidiji – pove}awu broja hromozomskih setova. Poliploidna nova vrsta nastaje kada se ukrste jedinke ~iji gameti sadr`e vi{e od jednog seta hromozoma. Na primer, od diploidnih (2n) roditeqa usled nerazdvajawa hromozoma mogu da nastanu tetraploidne (4n) jedinke. One su reproduktivno izolovane od ostatka populacije jer bi s wima davale sterilno triploidno (3n) potomstvo. Tako se, tokom samo jedne generacije, putem poliploidije uspostavqa prepreka za protok gena izme|u roditeqske i novostvorene, potoma~ke vrste.
Ovaj na~in specijacije naro~ito je ~est kod biqaka. Postoji i kod `ivotiwa, ali je vrlo redak jer biqke imaju jednostavnije razvi}e i ~esto se razmno`avaju bespolno. Mnoge poznate gajene vrste biqaka nastale su na ovaj na~in: p{enica (6n), duvan (4n), kikiriki (4n) itd.
Veoma je va`no definisati vrstu na odgovaraju}i na~in. Bez toga ne bismo mogli da odredimo ukupan broj vrsta i brzinu nastanka novih vrsta, kao ni brzinu izumirawa; ne bismo mogli da za{titimo ugro`ene vrste, da pouzdano identifikujemo vrste kod grupa koje su vrlo va`ne za ~oveka (npr. onih koje imaju medicinski zna~aj kao izaziva~i i prenosioci raznih bolesti, kod doma}ih `ivotiwa i gajenih biqaka i wihovih parazita) i sli~no. Ipak, treba imati na umu da biolo{ku vrstu nije lako definisati zbog ogromne raznovrsnosti `ivih bi}a, razli~itih na~ina `ivota, organizacije i reprodukcije.
Kako se pojavio `ivot na na{oj planeti – pitawe je koje qudi postavqaju od davnina. Ideja spontanog nastanka `ivih bi}a iz muqa javqa se jo{ kod anti~kih filozofa. Od tog vremena pa sve do druge polovine XVII veka mislilo se da `iva bi}a mogu da nastanu iz ne`ive materije, muqa, raspadaju}e organske materije. Recimo, da crvi i muve nastaju od mesa koje se raspada. Italijanski lekar i prirodwak Fran~esko Redi pru`io je (u XVII veku) jedan od prvih dokaza protiv ove teorije: opisao je razvi}e insekata i jednostavnim eksperimentima dokazao da oni ne nastaju od ukvarenog mesa, ve} iz jaja koja su polo`ile oplo|ene `enke.
Otkri}e mikroskopa otvorilo je pred nau~nicima ~itav jedan novi svet – svet mikroskopskog `ivota. Da i mikroorganizmi nastaju od sebi sli~nih bi}a (a ne od ne`ive materije), nepobitno su dokazali eksperimenti francuskog nau~nika Luja Pastera u XIX veku, pa je teorija spontanog postanka kona~no odba~ena.
Kako su onda nastali prvi oblici `ivota? Tim pitawem bavi se savremena teorija postanka `ivota (biogeneze), ~ije su osnove postavili ruski biohemi~ar Oparin i engleski geneti~ar Holdejn jo{ u prvim decenijama pro{log veka. Prema toj teoriji, `iva bi}a su nastala postepeno, kroz vi{e faza, iz neorganske materije. Biolo{koj evoluciji prethodila je hemijska evolucija, koja se sastojala u postepenom prelasku od jednostavnih ka vrlo slo`enim molekulima.
@ivot je nastao u uslovima sasvim druga~ijim od onih koji danas vladaju. Podaci iz razli~itih izvora (analize najstarijih stena na Zemqi, Meseca i meteorita) omogu}ili su da rekonstrui{emo te uslove, kao i vreme kada je do{lo do pojave `ivota. Zemqa se formirala pre oko 4,5 milijardigodina, a `ivot se pojavio pre oko 3,8 milijardigodina. Najstariji mikrofosili sta ri su oko 3,5 milijardi godina.
Atmosfera prvobitne Zemqe po sastavu veoma se razlikovala od dana{we. Imala je malo ili nimalo slobodnog kiseonika, a bila bogata vodonikom, metanom i amonijakom. Sadr`ala je i druge gasove, kao {to su ugqen-dioksid, ugqen-monoksid i vodonik-sulfid.
Tokom prve faze hemijske evolucije, od malih neorganskih molekula nastali su organski molekuli: amino-kiseline, nukleotidi, {e}eri. Neophodni uslovi za wihov nastanak bili su prisustvo osnovnih gradivnih komponenata (malih molekula) i izvora energije, a odsustvo slobodnog kiseonika. Kiseonik je vrlo reaktivan element, tako da organski prethodnici `ivota stvoreni u atmosferi koja sadr`i slobodan kiseonik ne bi mogli dugo da opstanu. Na mladoj planeti oluje sa sna`nim elektri~nim pra`wewima, erupcije vulkana i jako zra~ewe (UV zra~ewe je, bez za{titnog ozonskog sloja, bilo mnogo sna`nije nego danas) predstavqali su bogate i raznovrsne izvore energije.
Milerov eksperiment
Pretpostavka da je u uslovima kakvi su vladali na prvobitnoj Zemqi moglo da do|e do abioti~ke sinteze malih organskih molekula prvi put je eksperimentalno proverena pedesetih godina pro{log veka. U jednom od najjednostavnijih i najpoznatijih ogleda u istoriji nauke, Miler je konstruisao aparat u kome je simulirao uslove koji su nekada vladali na Zemqi. U staklenom balonu nalazila se sme{a vodene pare, metana, amonijaka i vodonika. Elektri~na pra`wewa u takvoj „atmosferi” predstavqala su prvobitne izvore energije. Gasovi u „atmosferi” stupali su u razli~ite hemijske reakcije. Za samo nedequ dana u vodenom rastvoru – „moru” – pojavio se veliki broj razli~itih organskih jediwewa, ukqu~uju}i i amino-kiseline.
Milerov eksperiment kasnije su ponavqali mnogi istra`iva~i, mewaju}i uslove, koriste}i razli~ite me{avine gasova i izvore energije. Na taj na~in dobili su skoro sve biolo{ki zna~ajne molekule (amino-kiseline, {e}ere, purine, pirimidine i dr.) i dokazali da su organski molekuli zaista mogli da nastanu u uslovima kakvi su vladali pre vi{e milijardi godina.
„RNK
sme{a gasova
elektrode
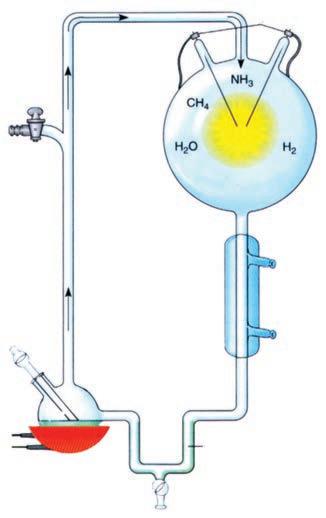
voda sa novonastalim organskim jediwewima
Milerov aparat
Mali organski molekuli su se nakupqali, a kada je wihova koncentracija postala dovoqno visoka, do{lo je do spajawa u slo`enije molekule – polimere. Prema Oparinu, koncentracija organskih molekula bila je tako visoka da se okean mogao porediti sa supom (to je postalo poznato kao „prebioti~ka supa”). Dana{wi podaci, me|utim, pokazuju da u po~etku nije moglo da bude toliko organske materije i da je do pojave ve}ih koli~ina organskih molekula najverovatnije do{lo na nekim mestima s posebnim uslovima. Prema savremenim istraživawima, takva mesta su mogla da budu plitki, poluisušeni zalivi ili vrući izvori na dnu okeana, i to na velikoj dubini.
Me|u nau~nicima je dugo postojalo neslagawe oko toga {ta su najva`nije odlike `ivog i koji su molekuli prvo nastali – nukleinske kiseline ili proteini. U dana{wim `ivim sistemima nema sinteze proteina bez nukleinskih kiselina, niti udvajawa nukleinskih kiselina bez proteina. Verovatno}a da dve grupe tako slo`enih molekula nastanu spontano i istovremeno na istom mestu zanemarqivo je mala.
Danas se istra`iva~i sla`u u tome da je prvo nastala RNK, kao prvi molekul koji je imao sposobnost da se udvaja, koji je nosio informaciju i imao ulogu i enzima i supstrata. To je bio RNK svet – svet u kome je RNK katalizovala sve neophodne reakcije.
Prvi molekuli RNK nastali su spontanim povezivawem malog broja nukleotida. Neki od tih oligonukleotida bili su sposobni da opstanu i umno`e se (tek kasnije su stekli i sposobnost da povezuju amino-kiseline u proteine).
Procesi udvajawa prvih oligonukleotida bili su vrlo neprecizni. Gre{ke su dovodile do pojave grupa sli~nih, ali ne i potpuno istih molekula. Tako se pove}avala raznovrsnost, a neki od tih molekula bili su stabilniji i udvajali se br`e i ta~nije od ostalih.
Ribonukleinska kiselina mo`e brzo da se mewa, {to potvr|uju i podaci o savremenim RNK virusima: poznato je da neki od wih evoluiraju velikom brzinom. Tako je za virus gripa proceweno da se mewa brzinom milion puta ve}om nego prose~an protein kod ~oveka. Virus humane imunodeficijencije (HIV) tako|e brzo evoluira, tako da je uo~ena wegova znatna geneti~ka raznovrsnost i unutar pojedina~nog doma}ina.
virus gripa
U slede}em koraku do{lo je do sinteze proteina. Ribonukleinska kiselina je po~ela da povezuje amino-kiseline, a novonastali proteini preuzeli su deo wenih funkcija.
Kada i kako su grupe slo`enih molekula – polimera – napravile kqu~ni pomak i postale `ive }elije? Većina naučnika smatra da su se prve ćelije pojavile upravo u ovo vreme. Prve ćelijske membraneformirale su se postepeno.
Geneti~ka informacija se zatim „preselila” u DNK. Najpre su se, u slo`enim hemijskim reakcijama „RNK sveta“, pojavile osnovne gradivne komponente DNK. Zatim je postepeno, u vi{e koraka, nastao ~itav slo`eni mehanizam za ponovno prepisivawe informacije u RNK, kao i za udvajawe DNK.
Kakvu je prednost donela DNK? Ona je stabilnija od RNK i te`e se razgra|uje. Pored toga, pojava DNK je omogu}ila razdvajawe procesa replikacije i translacije, odnosno ve}u kontrolu, efikasnost i ta~nost tih procesa.
„Veliko drvo `ivota” i postanak eukariota
Na zajedni~ko poreklo svih `ivih bi}a ukazuje to {to imaju niz zajedni~kih osobina, pre svega iste osnovne biohemijske procese, zasnovane na nukleinskim kiselinama i proteinima, i zajedni~ki geneti~ki kod.
Najstariji oblici `ivota bili su jedno}elijski. U drevnim formacijama stena Australije prona|eni su fosili prokariotskih }elija, po izgledu sli~nih dana{wim cijanobakterijama, ~ija je starost oko tri i po milijarde godina. Te prve }elije bile su anaerobi.
„Veliko drvo `ivota” deli se na tri osnovne grane: eubakterije, arhebakterije i eukariote. Najstarije }elije bile su prokariotske. Eukarioti su postali od prokariota. ]elijske organele kao {to su mitohondrije i hloroplasti vode poreklo od prokariota koji su nekada slobodno `iveli u spoqa{woj sredini, slu~ajno dospeli unutar neke }elije doma}ina i ostali u woj na obostranu korist, tj. postali weni simbionti. Simbiont je unutar }elije doma}ina na{ao stabilniju i sigurniju sredinu, a „podela posla” koja je usledila koristila je doma}inu.
Dokazi da mitohondrije i hloroplasti poti~u od prokariotskih predaka su mnogobrojni. Na primer, te organele imaju sopstvenu DNK koja je organizovana kao bakterijski hromozom i dele se nezavisno od deobe same }elije.
arhee
eukarioti
bakterije
„Veliko drvo `ivota”
U anti~koj Gr~koj postojala je sna`na prirodwa~ka i medicinska tradicija. Aristotela s pravom nazivaju prvim velikim prirodwakom. Sakupio je i sistematizovao sva tada{wa znawa o `ivom svetu, uspostavio gradaciju od ne`ivog ka najslo`enijim oblicima `ivog, a wegova shvatawa su vekovima uticala na prirodwake. Anti~ki filozofi postavqali su pitawe porekla `ivota, tra`e}i osnovni element iz kojeg je sve nastalo. Za Talesa je to voda, za Heraklita vatra, dok je Empedokle govorio o ~etiri ve~na, nepromenqiva elementa – vatri, vodi, zemqi i vazduhu, iz kojih su nastala sva `iva bi}a. Za anti~ke filozofe je karakteristi~no shvatawe da su `iva bi}a nastala spontano, kao rezultat stvarala~ke mo}i prirode.
Fosili su okameweni ostaci ili tragovi bi}a koja su nekada `ivela – ~itavi organizmi, wihovi delovi ili tragovi aktivnosti, kao {to su otisci stopala. Nauka koja se bavi fosilima naziva se paleontologija
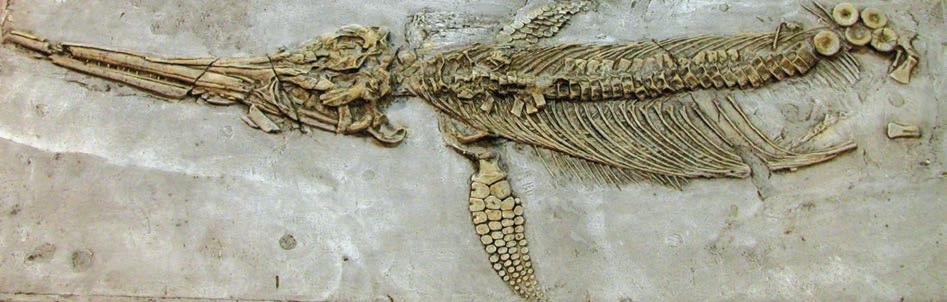
Fosili se nalaze u sedimentnim stenama koje su nastale talo`ewem i stvrdwavawem slojeva peska ili muqa. Fosilizacija po~iwe kada se organizmi na|u zatrpani u sedimentnom sloju. U tom procesu ve}u {ansu da se sa~uvaju imaju tvrdi delovi tela (kosti i qu{ture `ivotiwa ili drvenasti delovi biqaka). U retkim slu~ajevima, pod posebnim okolnostima, mogu se dobro o~uvati i meki delovi tela, kao kod insekata u }ilibaru ili mamuta u naslagama leda.
Fosili predstavqaju izvor direktnih podataka o evoluciji, o promenama i rasprostrawewu vrsta u vremenu i prostoru. Mada se o tome mo`e saznati uporednim prou~avawem dana{wih organizama, samo fosilni ostaci daju neposredan uvid u evolucionu istoriju `ivog sveta.
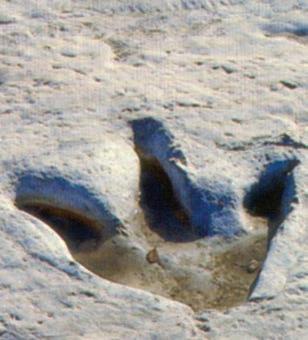
Okameweni trag dinosaurusa
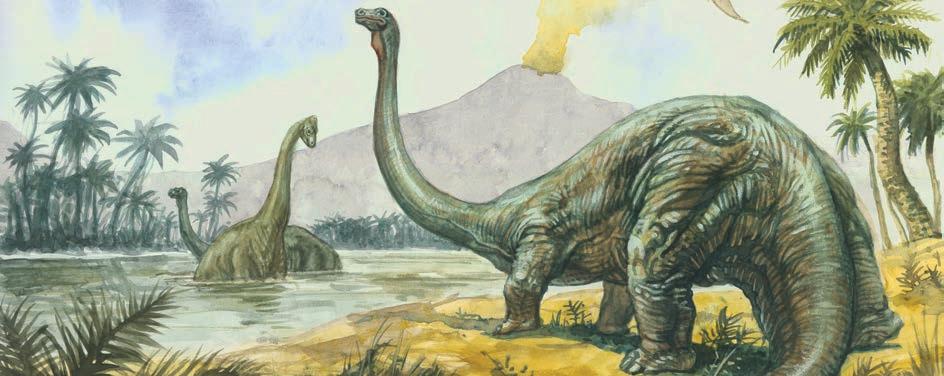
Fosili su poznati jo{ od anti~kih vremena. U sredwem veku su ih smatrali „spontanim tvorevinama” u stenama ili ostacima bi}a koja su stradala u Potopu. Me|utim, od XVIII veka nadaqe zabele`en je ogroman broj fosilnih nalaza i postalo je jasno da su to ostaci vrsta koje su nekada `ivele.
Zato je va`no pitawe potpunosti fosilnih ostataka. Naime, fosilni nalazi su ~esto nepotpuni, a razli~ite grupe `ivih bi}a su vrlo neravnomerno zastupqene. Na to uti~u verovatno}a fosilizacije, kao i verovatno}a da }e fosili biti dostupni. Me|u fosilnim nalazima `ivotiwa mnogo su zastupqenije vrste koje imaju skelet. Kod biqaka se najboqe o~uvaju drvenasti delovi i polen. Verovatno}a fosilizacije ve}a je za vrste koje `ive u odgovaraju}oj sredini – na primer, ve}a je za morske nego za kopnene organizme, naro~ito za one koje `ive na morskom dnu. Neke grupe, ina~e vrlo bogate vrstama, kao {to su insekti, ostavile su mali broj fosila.
Fosilizacija po~iwe kada se organizmi na|u zatrpani u nekom mekom sloju, obi~no u pesku ili muqu.
I posle uspe{ne fosilizacije daqa sudbina fosila zavisi od mnogo ~inilaca. Stvrdwavawem sedimentnog sloja nastaje stena. U tom procesu fosili mogu da budu uni{teni ili deformisani.Tektonski pokreti potiskuju stene u razli~itim smerovima, tako da fosili mogu da budu potisnuti u veliku dubinu i uni{teni ili dospeti u slojeve blizu povr{ine, {to olak{ava wihovo nala`ewe.
Te{ko je dati odgovor na pitawe koliko ima fosilnih vrsta. Do sada ih je otkriveno vi{e od 250 000, a sama ~iwenica da su neke fosilne vrste zastupqene u pojedina~nim primercima ukazuje na mno{tvo onih koje su nestale bez traga.
Starost stena i fosila odre|uje se relativnim i apsolutnim metodama. Relativna starost odre|uje se na osnovu redosleda slojeva stena: mla|i slojevi se nalaze iznad starijih, a razli~iti slojevi sadr`e razli~ite fosilne vrste.
Otkri}e radioaktivnog raspada omogu}ilo je odre|ivawe apsolutne starosti stena (u godinama, tj. milionima godina). Metod radiometrijskog datirawa zasniva se na raspadu nestabilnih izotopa: od „roditeqskog” elementa nastaje „potoma~ki” element. Na primer,
ugqenikov izotop 14C raspada se daju}i azot 14N, a raspadom urana 235U nastaje olovo 207Pb
To se odvija stalnom stopom – u svakoj jedinici vremena raspada se konstantna proporcija prisutne koli~ine elementa. Na osnovu proporcije dva elementa u steni, roditeqskog i potoma~kog, mo`e se odrediti wena starost. Radiometrijski metod datirawa veoma je pouzdan, a upotreba razli~itih izotopa pru`a mogu}nost vi{e nezavisnih procena starosti.
Geolo{ko vreme
U XIX veku, na osnovu karakteristi~nih fosila, ustanovqena je podela geolo{kog vremena na ere i periode.
Era
Po~iwe pre oko (mil. god.) Period @ivi svet
KVARTAR
KENOZOIK 65
• doba sisara i skrivenosemenica
MEZOZOIK 250
PALEOZOIK 540
TERCIJAR*
KREDA
JURA
TRIJAS
PERM
KARBON
DEVON
SILUR
ORDOVIK
KAMBRIJA
PREKAMBRIJA (više era) 4 500
• doba gmizavaca i golosemenica
• doba riba i vodozemaca, ogromne {ume drvolikih paprati, pre~ica i rastavi}a
• doba beski~mewaka, pojava prvih kopnenih biqaka
• prvi vi{e}elijski organizmi
• pojava eukariota
• postanak `ivota
* Prema novoj podeli, tercijar je zamewen s dva perioda.
Nazivi geolo{kih era – paleozoik, mezozoik i kenozoik – u prevodu zna~e stari, sredwi i novi `ivot. Neki geolo{ki periodi su dobili naziv po karakteristikama slojeva, kao karbon – po bogatim naslagama ugqa, ili kreda – po naslagama krede. Popularni period jura dobio je naziv po planini na granici Francuske i [vajcarske.
Od postanka Zemqe, tokom ~etiri i po milijarde godina, doga|ale su se velike promene –mewao se sastav atmosfere (sadr`aj kiseonika se pove}avao), kao i klima i nivo mora, a to
je imalo dramati~ne posledice po `ivi svet. Kopnene mase su se kretale i mewale raspored, {to je bitno uticalo na geografsko rasprostrawewe vrsta.
Dana{wi izgled i raspored kontinenata posledica su pomerawa kontinentalnih plo~a, delova Zemqine kore koji klize u razli~itim smerovima, me|usobno se sudaraju ili udaqavaju, spajaju i razdvajaju. Posledice toga su i zemqotresi i uzdizawe planinskih lanaca, kao {to su Himalaji.
Tokom velikog dela geolo{ke istorije klima na Zemqi je bila znatno toplija nego danas, ali je bilo i hladnih perioda, ukqu~uju}i ledena doba. Za vreme ledenih doba led se spu{tao s polova, klima je postajala hladnija i suvqa, nivo mora je opadao, a biqne i `ivotiwske vrste povla~ile su se ka tropskim oblastima. Tokom me|uledenih doba de{avalo se suprotno – klima je bila toplija i vla`nija, nivo mora je rastao, a biqne i `ivotiwske vrste pomerale su se ka polovima.
Teoriju kojom se obja{wava pojava ledenih doba dao je na{ poznati nau~nik Milutin Milankovi}.
Milutin Milankovi} (1879–1958)
Prvi, mnogo du`i deo geolo{ke istorije Zemqe trajao je oko ~etiri milijarde godina. Za to vreme odigrali su se neki od najzna~ajnijih doga|aja u istoriji `ivog sveta (postanak prvih `ivih bi}a, pojava fotosinteze, eukariota i prvih vi{e}elijskih organizama), ali su fosilni ostaci iz tog razdobqa malobrojni. Paleontolozi su ranije ~ak verovali da ih uop{te i nema, pa su ovo razdobqe nazivali „vreme skrivenog `ivota”. Najstariji danas poznati fosili stari su oko tri i po milijarde godina (str. 151). To su male loptaste ili kon~aste tvorevine, nalik na dana{we bakterije ili alge, koje nam pru`aju podatke o po~ecima `ivota na Zemqi.
Trilobit, izumrli zglavkar, stanovnik paleozojskih mora
Paleozoik se mo`e ozna~iti kao „vreme beski~mewaka”. Po~etkom ove ere pojavile su se sve velike grupe dana{wih `ivotiwa, o ~emu svedo~e mnogobrojni i raznovrsni fosili beski~mewaka, kao i fragmentarni ostaci najstarijih ki~mewaka. @ivot je tada bujao u plitkim morima. Tek kasnije osvojio je i kopnenu sredinu. Kolonizacija kopna bila je jedan od najva`nijih doga|aja u evoluciji. Male, jednostavne biqke i sitni zglavkari utrli su put kopnenom `ivotu u dana{wem smislu. Te biqke su imale osobine (kqu~ne adaptacije) koje su im omogu}ile opstanak i razmno`avawe van vode – spore i posebne tipove }elija.
Sredinom paleozoika mori ma su dominirale ribe (naro~ito brojne vrste primitivnih ajkula), a na kopnu su se po javili vodozemci. Biqni svet je postajao sve bogatiji i raznovrsniji. Geolo{ki period karbon je i dobio naziv po bogatim naslagama ugqa, ostacima ogromnih {uma drvolikih paprati, pre~ica i rastavi}a koje su prekrivale najve}i deo kopna.
Mezozoik je bio vreme velikih promena u Zemqinoj kori, koje su uticale na rasprostrawewe i raznovrsnost `ivog sveta. Do tada jedinstveno svetsko kopno po~elo je da se deli na kontinente. U moru i na kopnu evoluirale su mnoge grupe `ivotiwa. Ipak, sve su ostale u senci gmizavaca koji su dominirali svetom mezozoika. Zato je mezozoik poznat kao „doba gmizavaca”. Biqni svet se tako|e mewao – do{lo je do dominacije golosemenica. (Neke u to vreme vrlo rasprostrawene grupe golosemenica danas su potpuno izumrle, ili su predstavqene „`ivim fosilima”, kao {to je ginko.)
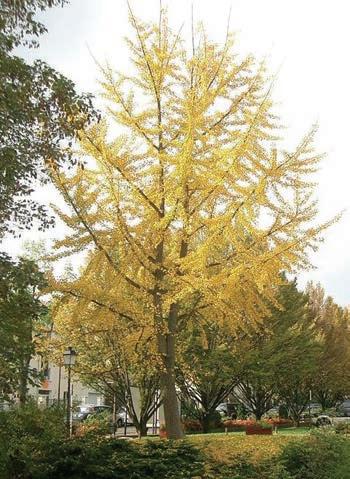
Mezozoik je poznat kao „doba gmizavaca” Ginko
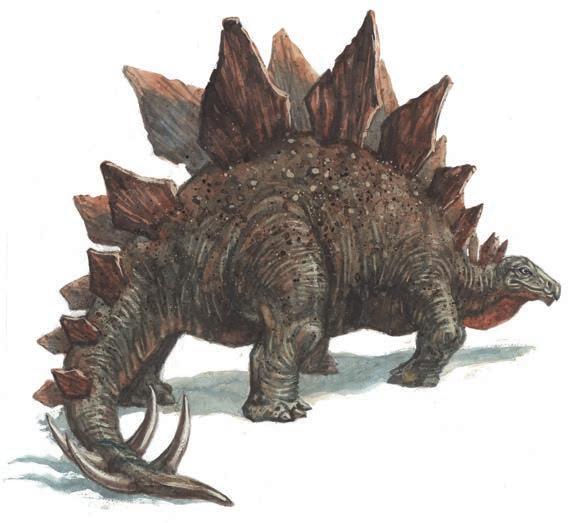
@ivi fosili su drevne vrste, posledwi predstavnici grupa koje su izumrle pre vi{e miliona godina, kao {to je riba latimerija, koja `ivi u okeanskim dubinama, ili drvo ginko.
Kenozoik se mo`e nazvati „dobom si sara“. Evolucija sisara obele`ila je ovu eru. Kada je re~ o biqnom svetu, to je doba dominacije skrivenosemenica. Vremenom je do{lo i do znatnog pove}awa raznovrsnosti zeqastih biqaka – klima se mewala i {ume su ustupale mesto travnim zajednicama. Za kvartar je karakteristi~no globalno zahla|ewe i smena ledenih i me|uledenih doba, {to je imalo velikog uticaja na `ivi svet. Vrhunac posledweg ledenog doba bio je pre oko 18 000 godina.
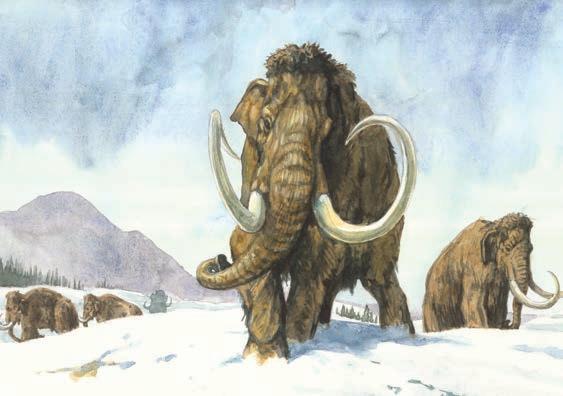
Vrsta je izumrla kada nestane i posledwi wen pripadnik. I{~ezla vrsta se ne mo`e ponovo pojaviti. Izumirawe vrsta de{ava se neprestano. Broj vrsta koje su nekada `ivele daleko prevazilazi broj onih koje danas postoje na na{oj planeti.
Za razliku od postepenog izumirawa, koje se stalno odvija niskom stopom, nekoliko puta tokom istorije Zemqe do{lo je do masovnog izumirawa, kada je za relativno kratko vreme nestao veliki broj vrsta. Masovna izumirawa najve}eg obima dogodila su se krajem paleozoika i krajem mezozoika.
Uzroci izumirawa vrsta su brojni i slo`eni: ukqu~uju poreme}aje ili uni{tewa stani{ta usled promena klime, nivoa mora, temperature i hemijskog sastava morske vode i sl., kao i interakcije s drugim vrstama. Masovna izumirawa uzrokovana su velikim promenama u `ivotnoj sredini, kao {to su povla~ewe mora, promene klime, katastrofalni udari malih nebeskih tela, erupcije supervulkana...
Sigurno najpoznatije masovno izumirawe desilo se pre oko 65 miliona godina, krajem krede, kada su prakti~no zbrisane mnoge grupe `ivotiwa. Najte`e su pogo|eni morski beski~mewaci i gmizavci. Nijedan od dinosaurusa, morskih gmizavaca ihtiosaurusa ili gmizavaca leta~a nije pre`iveo kraj krede. Na kopnu su izumrli i svi krupniji ki~mewaci, dok su mali ki~mewaci i biqke u velikoj meri bili po{te|eni. Geolo{ki podaci pokazuju da je bilo vi{e uzroka ovog izumirawa, a jedan od najva`nijih je udar meteora.
Pre 65 miliona godina veliki meteor je udario o Zemqu u blizini Jukatana u Meksiku. Izazvao je katastrofalne posledice: serije zemqotresa i po`ara, plimske talase koji su opusto{ili obalu, izbacivawe ogromne koli~ine dima i ~estica u vazduh, {to je dovelo do du-
gotrajnog zamra~ewa (smawewa koli~ine Sun~eve svetlosti), globalne promene klime i velikih poreme}aja u svim ekosistemima.
Najpoznatiji me|u izumrlim gmizavcima su dinosaurusi. Naziv, koji zna~i „stra{ni gu{teri”, dobili su jo{ u xinovske vrste. Nisu svi dinosaurusi bili ogromni. Neke vrste su bile sasvim sitne, te`ine oko 2 kg biqojedi spadaju u najve}e `ivotiwe svih vremena – bili su te{ki 80, pa i ~itavih 100 t
U na{oj zemqi ima mnogo fosilnih ostataka mamuta. To su bili xinovski surla{i, ve}i od dana{wih slonova. Tela su im bila prekrivena debelim krznom. Imali su mo}ne kqove, duga~ke i do 3,5 m
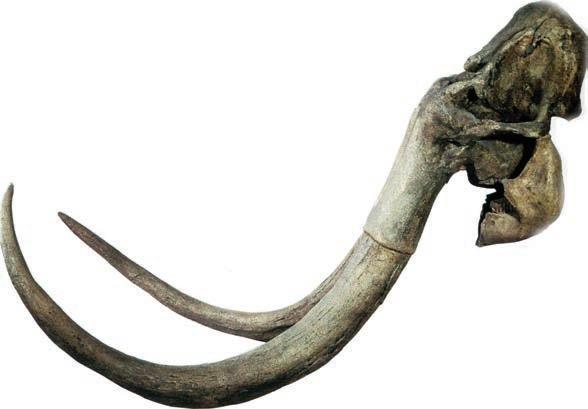
Do izumirawa ve}ih razmera dolazilo je i kasnije. U novije vreme izumrli su mnogi krupni sisari, karakteristi~ni za ledeno doba, kao {to su mamut i sabqozubi tigar. Konzervacioni biolozi upozoravaju da je upravo danas u toku novo masovno izumirawe, uzrokovano pre svega aktivno{}u ~oveka.
Od druge polovine XIX veka pa nadaqe sve su brojniji podaci o poreklu i evoluciji ~oveka. Fosilni ostaci svedo~e ne samo o promenama u gra|i tela ve} i o na~inu `ivota i ishrane na{ih predaka.
Na{a vrsta spada u primate, jedan od najstarijih redova sisara. Posle masovnog izumirawa gmizavaca krajem mezozoika, nastupilo je „doba sisara”. Mnogi primati promenili su na~in `ivota i pre{li na drve}e jer su na tlu glodari bili znatno uspe{niji.
Osobine primata koje su va`ne za uspe{an opstanak na drve}u (adaptacije na takav na~in `ivota) vezane su pre svega za na~in kretawa i ishrane. Na primer, gra|a {ake (pet prstiju i palac postavqen nasuprot ostalim prstima) takva je da omogu}uje ~vrsto hvatawe, a predwi udovi su vrlo pokretqivi, {to olak{ava kretawe po granama.
Tokom evolucije primata do{lo je do pove}awa mase mozga, kao i do promena vezanih za ~ula. Prvi primati su bili no}ne `ivotiwe. S prelaskom na dnevni na~in `ivota sve vi{e su se oslawali na ~ulo vida. Pomerawe o~iju s bo~nih strana napred omogu}ilo je dubinski vid, tj. preciznu procenu razdaqine, {to predstavqa izuzetno va`nu adaptaciju na kretawe po granama.
Za primate je, tako|e, karakteristi~no da imaju mali broj potomaka, kao i produ`en period u kome roditeqi vode brigu o potomstvu i podu~avaju ga.
U primate spadaju polumajmuni, majmuni, čovekoliki majmuni i čovek. Na osnovu rezultata savremenih istraživawa, za grupu koja obuhvata sve vrste u liniji čoveka (tj. sve vrste od vremena posledweg zajedničkog pretka s linijom najbližih čovekolikih majmuna – šimpanzi) sada se koristi naziv hominini.
Mnogobrojni fosilni ostaci, kao i molekularnobiolo{ki podaci dobijeni prou~avawem savremenih vrsta, omogu}ili su da se odredi vreme razdvajawa linija ~ovekolikih majmuna i qudi od zajedni~kog pretka: linija gorila odvojila se pre osam do deset miliona godina, a linija {impanzi pre oko {est miliona godina.
Savremeni podaci ukazuju na male razlike ~oveka i ~ovekolikih majmuna na molekularnom nivou. Na primer, redosled amino-kiselina u hemoglobinu ~oveka i {impanze potpuno je isti, dok se hemoglobin gorile razlikuje za samo dve amino-kiseline.
U najzna~ajnije karakteristike evolucije ~oveka spadaju pojava uspravnoghoda (dvono`nog kretawa) i znatno pove}awe mase mozga
Fosilni podaci pokazuju da se uspravan hod pojavio vrlo rano u liniji čoveka i da je uzrokovao niz promena u građi tela. Kičma je dobila oblik slova S, karlica je postala kraća i šira, promenio se izgled butne kosti, a palac stopala više nije bio postavqen nasuprot ostalim prstima. Dvonožno kretawe se pojavilo još u šumskim staništima. Kasnije, s povlačewem šuma i širewem savana, hominini su morali da se prilagode novim uslovima života(potraga za hranom na otvorenom, prisustvo krupnih meso`dera), a uspravan hod je pru`ao niz prednosti – boqu preglednost terena, mogu}nost preno{ewa hrane i mladunaca i sl.
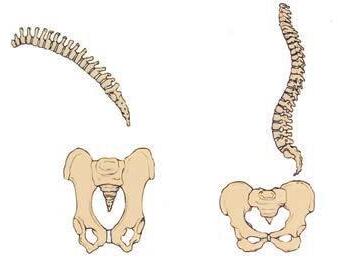
Promene u gra|i tela vezane za uspravan hod –izgled ki~me i karlice kod gorile i ~oveka.
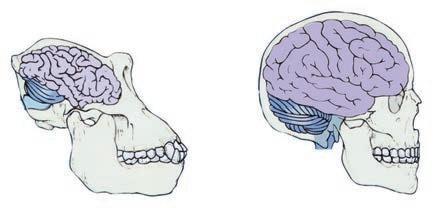
Zapremina mozga i izgled lobawe kod gorile i ~oveka.
Pove}awe mase mozga u odnosu na veli~inu tela naro~ito je izra`eno od vremena pojave prvih predstavnika na{eg roda (Homo), pre oko dva i po miliona godina. Tokom evolucije ~oveka do{lo je i do upadqivih promena oblika lobawe – lice zauzima mawi deo u odnosu na ukupnu veli~inu lobawe, oblik vilice se mewa i postaje vi{e ovalan, a zubi su mawi i ne`nije gra|e.
U najstarije čovekove pretke spada grupa australopitecina, koje su naseqavaleisto~nu i ju`nu Afriku. Pojavile su se pre vi{e od ~etiri miliona godina, a posledwi predstavnici su nestali pre ne{to vi{e od milion godina. Dobile su naziv po prvom opisanom rodu Australopithecus, {to zna~i „ju`ni majmun”. Lice im je bilo sli~no savremenim ~ovekolikim majmunima (nisko ~elo, izra`en ko{tani greben iznad o~iju, isturena vilica s jakim kutwacima). Imali su znatno mawu zapreminu mozga u odnosu na savremene qude. Gra|a karlice i kostiju nogu pru`a jasne dokaze o tome da su se kretali uspravno.
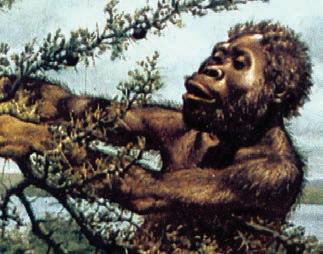
Prva opisana vrsta australopitecina je Australopithecus africanus. Prona|ena je dvadesetih godina pro{log veka u ju`noj Africi. U to vreme najstariji poznati nalazi ~ovekovih predaka („javanski ~ovek”) pripadali su rodu Homo. Otkri}e starijeg i primitivnijeg pretka izazvalo je veliku pa`wu, pa su uskoro usledili mnogobrojni nalazi drugih fosilnih australopitecina. Popularni fosil Lusi pripada jo{ starijoj vrsti (Australopithecus afarensis), koja je `ivela u isto~noj Africi.
„Lusi”, ostaci skeleta i rekonstrukcija
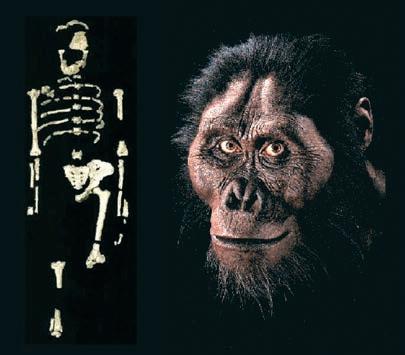
Najstarija vrsta na{eg roda je Homo habilis, {to u prevodu zna~i spretni ~ovek Pripadnici ove vrste imali su ve}i mozak i mawe zube nego australopitecine. Pojavili su se pre 2,4 milionagodina. U to vreme je do{lo do velike promene klime, do zahla|ewa koje je uslovilo promenu biqnih zajednica i na~ina `ivota. Ovo je prva vrsta hominida za koju se zna da je koristila oru|e – kamene o{trice za se~ewe mesa, na primer.
Ne{to kasnije, pre oko 1,8 milionagodina, pojavio se uspravni ~ovek – Homo erectus. (U vreme kada je ta vrsta opisana, nije se znalo da su i mnogo starije vrste hodale uspravno.)
Uspravni ~ovek je iz Afrike pre{ao na druge kontinente. Prvi nalaz ove vrste zabele`en je jo{ u XIX veku na ostrvu Java, pa je postao poznat kao „javanski ~ovek”. Ne{to kasnije, u Kini, u blizini Pekinga, otkriveni su ostaci vrste koja je opisana kao „pekin{ki ~ovek”. Danas je poznato da ovi nalazi, kao i brojni fosili s afri~kog kontinenta pripadaju vrsti Homo erectus
Najupadqivija karakteristika je veliko pove}awe mase mozga u odnosu na australopitecine i spretnog ~oveka. Za ovu vrstu vezuje se pojava savr{enijeg oru|a, lov na krupne `ivotiwe i upotreba vatre, o ~emu svedo~e ostaci ogwi{ta i nagorelih `ivotiwskih kostiju. Upotreba vatre omogu}ila je boqe pre`ivqavawe, a smawewe zuba tuma~i se time {to je uspravni ~ovek koristio obra|enu hranu.
Pre skoro pola miliona godina pojavila se nova vrsta, čiji pripadnici veoma liče na pripadnike naše vrste. Međutim, pošto postoje i upadqive razlike – zapremina mozga je mawa, oblik lobawe je drugačiji, a skelet i zubi su masivniji – naučnici su ovu vrstu nazvali arhaičan (starinski) čovek. Za arhaične qude karakteristično je znatno povećawe mase mozga u odnosu na prethodne vrste.
Istovremeno s arhaičnim qudima živeli su i drugi predstavnici našeg roda. Neandertalci su se pojavili pre više od 250 000 godina; živeli su širom Evrope, Bliskog istoka i zapadne Azije.Fosilni ostaci neandertalskog ~oveka otkriveni su u XIX veku u
Nema~koj. Po mestu na kojem su prona|eni (dolini Neander) vrsta je nazvana Homo neanderthalensis
Neandertalci pokazuju niz upadqivih razlika u odnosu na savremene qude. Wihova lobawa je druga~ijeg oblika, du`a i ni`a, sa istaknutim vilicama, zako{enim ~elom i isturenim sredwim delom lica. Zapremina mozga je ne{to ve}a nego kod dana{wih qudi. Po gra|i tela sli~ni su savremenim qudima adaptiranim na `ivot u hladnim predelima – niski su, zdepasti i sna`ni. Imali su razvijenu kulturu i mnogo napredniju tehnologiju izrade oru|a nego uspravni i arhai~ni ~ovek. Bili su izuzetni lovci. Tragovi na skeletima ukazuju na to da su vodili brigu o bolesnim i povre|enim ~lanovima. Fosilni tragovi neandertalaca nestaju pre oko 30 000 godina. Pretpostavqa se da je savremeni ~ovek – Homo sapiens, kao tehnolo{ki napredniji, bio uspe{niji i potisnuo neandertalce. Postavqa se pitawe da li je pri tome bilo ukrštawa između wih. Uspešne analize očuvane DNK neandertalaca ukazuju na to da su se ukrštawa i protok gena događali povremeno i u maloj meri.
Savremeni ~ovek, Homo sapiens, pojavio se pre vi{e od 190 000 godina. Ima veliku zapreminu mozga (u proseku oko 1350 cm3). Wegovo lice je smaweno u odnosu na ukupnu veli~inu lobawe, ~elo je visoko, brada istaknuta, a nado~ni lukovi nisu izra`eni. Skelet je ne`nije gra|e nego kod prethodnih vrsta. U najpoznatije fosilne nalaze spada kromawonski ~ovek, nazvan po nalazi{tu Kro-Mawon (Francuska). Kromawonska kultura nastala je pre oko 40 000 godina. Oru|e je znatno usavr{eno, a ne{to kasnije se javilo i pe}insko slikarstvo. Trend smawewa zuba i vilice i ne`nije gra|e tela nastavio se i tokom posledwih nekoliko desetina hiqada godina.
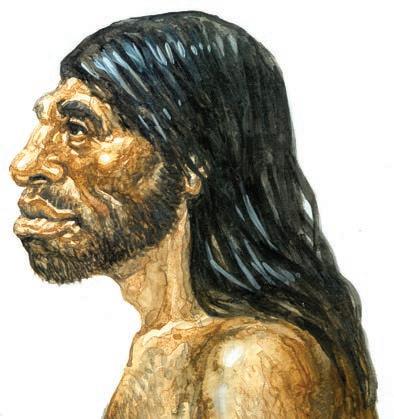
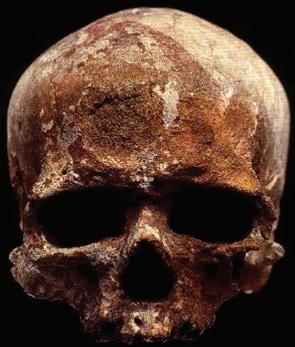
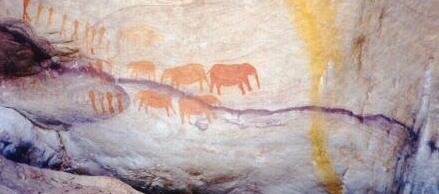
Postoji vi{e obja{wewa kako se savremeni ~ovek pojavio na razli~itim kontinentima. Ve}ina nau~nika prihvata model po kojem su savremeni qudi postali od arhai~nih u jednoj oblasti, i to u isto~noj Africi. Odatle su, u velikoj migraciji, naselili najpre Bliski istok, Evropu i ju`nu Aziju, a kasnije i ostale delove sveta, potiskuju}i i zamewuju}i arhai~ne qude. Ve}i broj paleontolo{kih i molekularno-geneti~kih podataka podr`ava taj model.
Tokom posledwih nekoliko godina naučnici su došli do niza značajnih otkrića. Pronađeni su fosilni ostaci hominina, čija se starost procewuje na više od 5 miliona godina. Novi nalazi mewaju naše viđewe prvih velikih migracija čovekovih predaka van Afrike. Rezultati molekularne paleontologije ukazuju i na vrlo složene odnose naše vrste s ostalim vrstama roda Homo tokom posledwih 200 000 godina. Savremene tehnike omogućile su da se analizira drevna DNK, stara i više od sto hiqada godina. Uspešno obavqene analize genoma neandertalaca dale su podatke o nivou genetičkih razlika između wih i savremenih qudi.
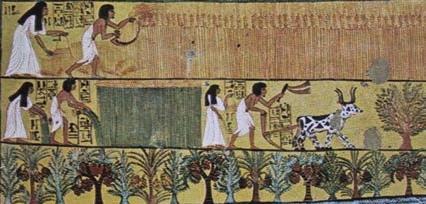
Jedno od najzanimqivijih i najva`nijih pitawa u vezi sa evolucijom na{e vrste jeste uticaj biologije i kulture (o odnosu uro|eno–ste~eno u pona{awu qudi ve} je bilo re~i). Koliko je na promene uticalo biolo{ko, „vertikalno” (kroz generacije) preno{ewe naslednih informacija, a koliko „horizontalno” preno{ewe znawa i ve{tina u~ewem i imitacijom? Ovaj drugi na~in je znatno br`i i efikasniji, a pogodovale su mu osobine koje smo ve} pomenuli – mali broj potomaka i produ`en period wihovog podu~avawa. [ta je to {to se mewalo u na~inu `ivota ~oveka, a {to je omogu}ilo boqe pre`ivqavawe i ve}i broj potomaka? Neke od kqu~nih promena su bile razvoj dru{tava lovaca i sakupqa~a, razvoj zemqoradwe i sto~arstva i industrijska revolucija. To je omogu}ilo pove}awe dostupnih izvora hrane, porast brojnosti stanovni{tva, osvajawe novih `ivotnih sredina, kao i wihovo modifikovawe prema sopstvenim potrebama.
^ovek vi{e nego bilo koja druga vrsta mewa sredinu i stvara nove selekcione pritiske na sopstvenu vrstu. Dovoqno je uporediti selekcione pritiske u savremenim razvijenim dru{tvima i nekada{wim lova~ko-sakupqa~kim zajednicama – na~in `ivota, fizi~ka aktivnost, na~in pribavqawa hrane, wena dostupnost i kvalitet bitno su druga~iji. Savremena „brza hrana”, sa vi{kom masno}a i {e}era, sasvim se razlikuje od hrane na{ih predaka pre vi{e hiqada godina. Narodi koji imaju dugu tradiciju sto~arstva razvili su adaptacije koje im omogu}uju da koriste mleko u ishrani ~itavog `ivota. Razvoj medicine doveo je do iskorewivawa ili kontrole mnogih bolesti koje su harale u pro{losti, kao i do znatnog pove}awa prose~ne du`ine `ivota.
Tehnolo{ki napredak omogu}io je, pored ostalog, veliki porast brojnosti i veliku pokretqivost stanovni{tva (ve}u mogu}nost protoka gena), ali je doveo i do dramati~nog porasta zaga|enosti, pove}anog prisustva razli~itih fizi~kih i hemijskih mutagena, itd.
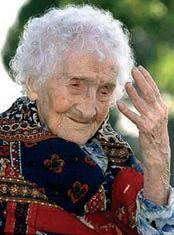
@ana Kalman (1875–1997) `ivela je 122 godine i pet meseci.
U prethodnim poglavqima mo`ete na}i mnogo primera kako se biologija i kultura pro`imaju, uti~u}i na evoluciju. S jedne strane, ~ovek uti~e na svoju evoluciju i na evoluciju drugih vrsta tehnolo{kim napretkom – mewaju}i sredinu sve vi{e i sve br`e, stvaraju}i nove uslove i nove selekcione pritiske. S druge strane, na pravac i brzinu evolucionih promena uti~e i to {to postajemo svesni {tetnih posledica i sposobni da promenimo svoje pona{awe, kao i odnos prema sredini i drugim vrstama. U tome veliku ulogu ima biolo{ko obrazovawe.
Pitawa i zadaci
1.Biolo{ku evoluciju defini{emo kao:
a) iskqu~ivo spore i postepene promene, b) nasledne promene koje se odvijaju u populacijama kroz generacije, v) postanak vrsta, g) nasle|ivawe osobina koje su jedinke stekle tokom `ivota.
2.Da li evolucione promene moraju uvek da budu spore? Navedite primere.
3.Za{to je va`no da razumemo evolucione procese?
4.Za{to je neophodno da vodimo ra~una o o~uvawu geneti~ke raznovrsnosti gajenih vrsta biqaka i `ivotiwa?
5.Kako dobijamo podatke o promenqivosti `ivog sveta kroz generacije?
6.Da li postoje fosili prelaznih grupa?
7.Kako obja{wavate sli~nosti u obliku tela delfina i ajkula?
8.[ta je biogeografija?
9.Kako biogeografski podaci i podaci o gra|i tela savremenih organizama pokazuju da se `ivi svet mewao tokom vremena?
10.Australija je nekada davno bila spojena s drugim kontinentima, ali je ve} veoma dugo odvojena od wih. Pove`ite to s ~iwenicom da ima mnogo vrsta torbara u Australiji, a znatno mawi broj na drugim mestima.
11.Kako pratimo evoluciju na nivou molekula?
12.Kako je Darvin objasnio evoluciju `ivog sveta?
13.Za{to je samo nasledna varijabilnost va`na za evolucione procese?
14.Ako neko tokom vi{e generacija mi{evima odseca repove, da li }e oni posle toga dobijati bezrepo potomstvo?
15.Ako se bavite sportom i na taj na~in steknete sna`ne mi{i}e, da li }ete tu osobinu preneti na svoju decu?
16.Postojawe neobi~nih vrsta `ivotiwa i biqaka na okeanskim ostrvima, {to je jo{ Darvin zapazio na Galapagosu, obja{wava se time {to: a) na ostrvima ne deluje prirodna selekcija, b) ve{ta~ka selekcija je ~e{}a na ostrvima nego na kontinentu, v) ostrva su izolovana i na wima intenzivno deluje prirodna selekcija, g) evolucija se odvija vrlo sporo na ostrvima.
17.Zebe sa Galapagosa: a) pokazuju razlike u veli~ini kquna i na~inu ishrane, b) li~e na ju`noameri~ke vrste, v) prilago|ene su razli~itim uslovima na razli~itim ostrvima, g) sve navedeno.
18.Kako deluje prirodna selekcija? Objasnite na jednom primeru.
19.U navedenom primeru s leptirima (industrijski melanizam), objasnite {ta }e se desiti kada sredina opet postane ~istija. Kakvu promenu o~ekujete?
20.Kakve su sli~nosti, a kakve razlike izme|u prirodnog i ve{ta~kog odabirawa?
21.Mutacije su a) izvor geneti~ke varijabilnosti u populacijama, b) uvek {tetne, v) posledica toga {to jedinke prelaze iz jedne populacije u drugu.
22.Objasnite na koji na~in populacije mogu da razmewuju gene.
23.Navedite neke primere adaptacija.
24.[ta je simbioza?
25.Navedite neke primere koevolucije.
26.Sli~nost u izgledu nije uvek dovoqna da zakqu~imo da su u pitawu pripadnici iste vrste, kao {to ni razlike ne moraju obavezno da zna~e da je re~ o pripadnicima razli~itih vrsta. Navedite nekoliko primera razlika koje postoje me|u pripadnicima iste vrste.
27.[ta spre~ava ukr{tawe pripadnika razli~itih vrsta?
28.Navedite primere geografskih prepreka koje mogu da odvoje grupe jedinki i time stvore uslove za postanak nove vrste.
29.Koji od navedenih procesa mo`e biti zasnovan na promenama u broju hromozoma: a) postanak vrsta, b) masovno izumirawe, v) postepeno izumirawe.
30.Pore|ajte slede}e grupe organizama po redosledu pojavqivawa u fosilnim zapisima, po~ev od najstarije grupe: a) gmizavci, sisari, ribe, b) cvetnice, paprati, golosemenice.
31.[ta mo`emo saznati prou~avaju}i fosile?
32.Pojedine grupe `ivih bi}a su veoma dobro zastupqene u fosilnim nalazima –ostavile su vrlo brojne i potpune fosilne ostatke, dok su druge grupe zastupqene mnogo slabije – retkim i vrlo nepotpunim fosilnim nalazima. Kako biste objasnili te razlike?
33.Kako su se primati prilagodili `ivotu na drve}u?
34.Kakav je uticaj biologije i kulture na evoluciju na{e vrste?
Teme za diskusiju – rad na ~asu
Uvo|ewe stranih vrsta
Poznavawe evolucionih mehanizama neophodno je i da bismo procenili mogu}e posledice u slu~ajevima kada se uvode nove, strane vrste. Vi{e puta se dogodilo da uvo|ewe strane vrste izazove ozbiqne posledice. Tako su se, na primer, malobrojni kuni}i uneti u Australiju za kratko vreme toliko namno`ili da su ugrozili doma}e vrste i wihove izvore hrane. Prona|ite sli~ne primere.
Galapagoska ostrva
Sakupite podatke, slike i zanimqivosti o ovim ostrvima: kako izgledaju, kakav je `ivi svet zastupqen na wima i sli~no (mo`ete da napi{ete kra}i rad ili da napravite poster).
Ve}ina komaraca je osetqiva na odre|eni insekticid, dok su neki otporni. Opi{ite kakve }e se promene de{avati u u~estalosti razli~itih varijanata (otporni – neotporni) i u prilago|enosti populacije na sredinu koja se zapra{uje tim insekticidom.
Kako paleontolozi na osnovu fosilnih ostataka zakqu~uju o izgledu, na~inu `ivota i ishrane izumrle vrste i uslovima sredine koji su tada vladali? [ta mo`e da se sazna iz slede}ih podataka: gra|a zuba, fosilni ostaci drugih `ivotiwa i biqaka koje su `ivele na tom istom podru~ju u isto vreme, veli~ina i gra|a kostiju?
Izumrle `ivotiwe
Izaberite izumrlu vrstu koja je na vas ostavila najve}i utisak. Prona|ite najve}e, najmawe, najneobi~nije me|u izumrlim vrstama. Sakupite podatke o wima – slike i zanimqivosti – iz kwiga, sa Interneta i pomo}u drugih raspolo`ivih sredstava (od tog materijala mo`ete da napravite poster).
Masovna izumirawa
Nije redak slu~aj da se izumirawa velikih razmera u popularnoj literaturi obja{wavaju samo jednim uzrokom. [ta mislite – da li masovna izumirawa imaju jednostavne ili slo`ene i vi{estruke uzroke?
@ivi fosili
Da li ste nekada videli neki `ivi fosil? Sakupite slike razli~itih `ivih fosila me|u biqkama i `ivotiwama.
Kako ~ovek uti~e na evoluciju `ivog sveta? ^ovek na razli~ite na~ine uti~e na evoluciju `ivog sveta – na to kako }e se i kojom brzinom odvijati evolucione promene. Wegove aktivnosti izazivaju ogromne promene u sredini i uti~u na stani{ta velikog broja vrsta. Koji su pozitivni, a koji negativni uticaji ~oveka? Navedite primere pozitivnih i negativnih uticaja (prona|ite odgovaraju}e ilustracije).
Utoku svoje duge istorije, koja traje ve} vi{e od tri i po milijarde godina, `ivot se razvio u neverovatno velikom broju razli~itih oblika. Procewuje se da danas na Zemqi `ivi oko osam miliona razli~itih vrsta organizama, koji svoje `ivotne aktivnosti ostvaruju na najrazli~itije na~ine.
Iako je raznovrsnost razli~itih oblika `ivota gotovo neverovatna, bez obzira na to da li je u pitawu bakterija, gqiva, hrast ili mrav, sva `iva bi}a imaju slede}e zajedni~ke osobine:
• ra|aju se, razmno`avaju i umiru (reprodukcija),
• energiju neophodnu za svoje `ivotne aktivnosti dobijaju iz hrane koju na razli~ite na~ine razgra|uju u svojim telima (metabolizam),
• imaju sposobnost da reaguju na nadra`aje iz sredine koja ih okru`uje (senzibilitet) i
• imaju sposobnost da se na razli~ite na~ine kre}u u prostoru (pokretqivost).
@IVO BI]E Funkcije
Struktura
]elija
Tkivo Organ
Sistem organa
Organizam
Reprodukcija
Metabolizam
Senzibilitet
Pokretqivost
Zajedni~ke strukturne i funkcionalne osobine `ivih bi}a
Osim toga, sva `iva bi}a su gra|ena na isti na~in. Osnovna gradivna jednica svakog `ivog bi}a je }elija. ]elije su udru`ene u tkiva, tkiva u organe, organi u sisteme organa, a sistemi organa – u organizam
Me|utim, treba naglasiti da organizmi u prirodi ne `ive izolovano, kao pojedina~ne jedinke usamqene i nezavisne od svega {to ih okru`uje. Da bi jedna jedinka ili jedan organizam mogao da `ivi i pre`ivi, {to zna~i da bi mogao da raste i da se razvija, da se kre}e i da odgovara na nadra`aje iz spoqa{we sredine, i na kraju da se razmno`ava, on mora da `ivi u veoma kompleksnom prostoru u kojem uvek ima:
• drugih jedinki koje pripadaju istoj vrsti,
• drugih jedinki koje pripadaju razli~itim vrstama biqaka, `ivotiwa, gqiva i mikroorganizama,
• odre|ene koli~ine razli~itih oblika ne`ive materije i
• odre|ene koli~ine razli~itih oblika energije.
Tokom svog `ivota svaki organizam u prostoru u kojem `ivi neprekidno stupa u razli~ite vrste odnosa s drugim organizmima. Od prirode tih odnosa zavisi da li }e konkretni organizam uspeti da ostvari sve svoje `ivotne aktivnosti.
Osim toga, da bi mogao da `ivi i pre`ivi, svaki organizam mora da bude prilago|en uslovima sredine koju naseqava. Od stepena wegove prilago|enosti zavisi i uspe{nost ostvarivawa wegovih `ivotnih aktivnosti.
Dakle, `ivot svakog organizma odvija se u veoma slo`enom prostoru u kojem on neprekidno stupa u razli~ite odnose sa ostalim organizmima koji `ive zajedno s wim. A uspe{nost wegovog `ivota zavisi od stepena wegove prilago|enosti.
U prostoru u kome `ivi svako `ivo bi}e je okru`eno drugim `ivim bi}ima, neogranskom i organskom materijom i energijom Sun~evog zra~ewa.
Nauka koja se bavi prou~avawem prirode – prostora u kojem se odvija `ivot, zatim odnosa koji u prirodi postoje izme|u `ivih bi}a i spoqa{we sredine, kao i na~ina na koji su se `iva bi}a prilagodila razli~itim uslovima spoqa{we sredine naziva se ekologija.
Naziv ekologija dolazi od gr~kih re~i oikos, {to zna~i dom i logos, {to zna~i nauka.
Ekologija je izuzetno slo`ena nauka. U zavisnosti od objekata i problema kojima se bavi ona se razvrstava na veoma veliki broj posebnih nau~nih disciplina.
U odnosu na grupu organizama koju izu~ava, razlikuju se:
• ekologija biqaka,
• ekologija `ivotiwa,
• ekologija mikroorganizama,
• ekologija gqiva i
• ekologija ~oveka.
U odnosu na prirodu `ivotne sredine, razlikuju se:
• ekologija kopnene sredine,
• ekologija morske sredine,
• ekologija slatkovodne sredine i
• kosmi~ka ekologija.
U odnosu na nivo organizacije, razlikuju se:
• ekologija zajednica i ekosistema,
• populaciona ekologija i
• ekologija vrsta.
I na kraju, prema nameni istra`ivawa, razlikuju se:
• osnovna ekologija i
• primewena ekologija
O~uvana priroda i odnosi koji u woj vladaju predmet su istra`ivawa fundamentalne ekologije.
Danas ekologija predstavqa jednu od najzna~ajnijih prirodnih nauka. Ona dolazi u centar pa`we zbog toga {to je ~ovek svojim negativnim delovawem zagadio i naru{io prostor u kojem se odvija `ivot na na{oj planeti. U mnogim delovima sveta ugro`en je opstanak velikog broja biqaka i `ivotiwa, a stepen zaga|enosti je dostigao toliki nivo da je i opstanak samog ~oveka doveden u pitawe.
Osnovna ekolo{ka saznawa o zakonitostima koje vladaju u prostoru u kojem se odvija `ivot, kao i saznawa o na~inima prilago|avawa i pre`ivqavawa organizama predstavqaju neophodnu nau~nu osnovu za savremenu za{titu `ivotne sredine. Dakle, od stepena osnovnih ekolo{kih znawa zavisi i efikasnost za{tite `ivotne sredine, pa samim tim i budu}nost savremene civilizacije i kvalitet `ivota generacija koje dolaze.
Za{tita zaga|ene i naru{ene prirode mo`e biti uspe{na jedino ukoliko je bazirana na saznawima fundamentalne ekologije.
Kao {to je re~eno, u prirodi `iva bi}a ne `ive usamqeno i izolovano od `ivotne sredine koja ih okru`uje. Sva `iva bi}a `ive u grupama jedinki koje pripadaju istoj vrsti, zajedno s mnogobrojnim jedinkama drugih vrsta biqaka, `ivotiwa, gqiva i mikroorganizama. U prostoru u kojem `ive, osim drugih `ivih bi}a, nalazi se i mno{tvo razli~itih oblika ne`ive materije, kao i razli~ite vrste i koli~ine energije neophodne za `ivot svakog organizma.
(@ivotna sredina)
Struktura
Prostor u kom se odvija život naziva se EKOSISTEM1 U svakom ekosistemu ostvareno je neraskidivo jedinstvo različitih vrsta živih bića, različitih oblika nežive materije i različitih oblika energije. Ekosistemi nisu slučajni skupovi različitih vrsta živih bića, nežive materije i energije, koji u odre|enom prostoru egzistiraju nezavisno jedni od drugih. Ekosistemi predstavqaju najviše nivoe organizacije života na Zemqi, koji funkcinišu po veoma složenim ekološkim zakonima i principima. Ekosistemi su veoma složeni i dinamični sistemi, koji se udružuju u predele, biome i biosferu, koja predstavqa najviši nivo jedinstva živog i neživog na planeti Zemqi. Ovi najviši nivoi organizacije živog sveta predstavqaju posebne ekološke sisteme.
Biocenoza Biotop
Proizvo|a~i
Potro{a~i
Razlaga~i
Funkcije
Odnosi ishrane
Kru`ewe materije
Proticawe energije
Samoregulacija
Razvoj i evolucija
Neorganska materija
Organska materija
Klimatski re`im
Zajedni~ke strukturne i funkcionalne osobine ekosistema
1 Pojam ekosistema se u razli~itim kwigama i uxbenicima defini{e na razli~ite na~ine. Me|utim, svaka od tih definicija isti~e ~iwenicu da ekosistem predstavqa neraskidivo jedinstvo `ive i ne`ive prirode i da se `ivot i wegova evolucija odvijaju upravo u ekosistemima kao specifi~nim nivoima organizacije `ivih bi}a na Zemqi.
Svaki ekosistem sadr`i mawi ili ve}i broj razli~itih elemenata, koji se mogu razvrstati u dve osnovne velike grupe. S jedne strane se nalaze neorganska i organska materija, kao i razli~iti klimatski faktori, a s druge strane – `iva bi}a koja u~estvuju u izgradwi ekosistema.
Prostor sa razli~itim oblicima ne`ive materije i odgovaraju}im klimatskim karakteristikama u ekologiji se naziva stani{te ili biotop. Nasuprot tome, sva `iva bi}a koja `ive u odre|enom ekosistemu imaju zajedni~ki naziv `ivotna zajednica ili biocenoza Dakle, svaki ekosistem je izgra|en od ne`ivog stani{ta i `ivotne zajednice.
Telo svakog `ivog bi}a grade isti oni hemijski elementi koji se nalaze u ne`ivoj prirodi (ugqenik, vodonik, kiseonik, azot, fosfor i dr.). Gotovo svi vitalni `ivotni procesi zavise, tako|e, od hemijskih jediwewa iz spoqa{we sredine (voda, ugqen-dioksid i dr.). Zbog toga od vrste i koli~ine ne`ive materije u stani{tu umnogome zavisi kakve }e karakteristike imati i sam ekosistem.
Pored ne`ive materije, i klimatske prilike koje vladaju u stani{tu u velikoj meri odre|uju koje }e vrste `ivih bi}a mo}i da u|u u sastav biocenoze, odnosno ekosistema.
Na razli~itim mestima, u zavisnosti od klimatskih prilika i svojstava ne`ive prirode, dakle, u zavisnosti od karakteristika stani{ta, formirane su razli~ite `ivotne zajednice u ~iji sastav ulaze najrazli~itije vrste biqaka, `ivotiwa, gqiva i mikroorganizama. [to su razlike u karakteristikama stani{ta ve}e, to su i sastav i priroda biocenoze razli~itiji.
Me|utim, bez obzira na karakteristike stani{ta i broj razli~itih vrsta biqaka, `ivotiwa, gqiva i mikroorganizama koje ulaze u sastav biocenoze, svi ~lanovi `ivotne zajednice su, prema na~inu ishrane, uvek razvrstani u tri osnovne funkcionalne grupe: proizvo|a~i, potro{a~i i razlaga~i Proizvo|a~i su organizmi sposobni da samostalno proizvode hranu koju koriste za svoje `ivotne funkcije. Potro{a~i su organizmi koji u svojoj ishrani koriste gotove organske materije biqaka i drugih `ivih bi}a. Razlaga~i su organizmi koji u svojoj ishrani koriste razne uginule organizme ili wihove odba~ene delove.
Proizvo|a~i, potro{a~i i razlaga~i u `ivotnoj zajednici ne mogu `iveti jedni bez
U svakom kopnenom ekosistemu zajedno `ive razli~ite vrste biqaka (proizvo|a~i), `ivotiwa (potro{a~i) i gqiva (razlaga~i).
drugih. Kao {to `ivotiwe ne mogu da `ive bez biqaka, tako ni biqke ne mogu `iveti bez gqiva i bakterija, a gqive i bakterije ne mogu `iveti bez biqaka i `ivotiwa. Prema tome, da bi biocenoza mogla da opstane, ona mora da bude izgra|ena od predstavnika sve tri grupe organizama – proizvo|a~a, potro{a~a i razlaga~a, koji iskqu~ivo zajedni~kim radom stvaraju uslove za `ivot i opstanak biocenoze kao celine.
U svakom ekosistemu su izme|u `ivih bi}a i wihove ne`ive sredine uspostavqene mnogobrojne veze i odnosi kroz koje se ostvaruju osnovni ekolo{ki procesi bez kojih `ivot ne bi bio mogu}.
Izme|u `ivih bi}a u ekosistemu uspostavqaju se razli~ite vrste odnosa, me|u kojima su odnosi ishrane svakako najzna~ajniji. Razli~ite grupe organizama u ekosistemu hrane se na razli~ite na~ine, ali su svi me|usobno tako povezani da jedni bez drugih ne mogu da `ive. U procesima ishrane tokom vremena dolazi do stalnog kru`ewa materije izme|u biqaka, `ivotiwa, gqiva i mikroorganizama.
U svakom ekosistemu stalno neko nekoga jede, i stalno neko od nekoga biva pojeden
Sva `iva bi}a u ekosistemu za svoje `ivotne potrebe koriste ono {to se nalazi u wihovom stani{tu. Kad bi se voda, kiseonik, ugqen--dioksid i drugi oblici ne`ive materije koristili bez obnavqawa, brzo bi bili potro{eni. Zbog toga mnogi procesi u prirodi imaju kru`ni tok. Stalna razmena materije izme|u vazduha, zemqe, vode i `ivih bi}a u ekosistemima odvija se u procesima tzv. biogeohemijskih ciklusa
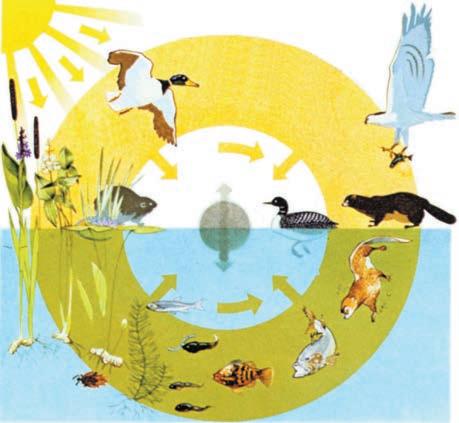
Kru`ewe materije i proticawe energije najspecifi~nija su osobina ekosistema.
Svim `ivim bi}ima je za rast, razmno`avawe, kretawe i ostale `ivotne procese neophodna energija. Izvor te energije je Sunce. Sun~evu energiju koriste zelene biqke da bi u procesu fotosinteze stvorile hranu koju u daqim odnosima ishrane koriste svi ostali organizmi u ekosistemu. Razgradwom hrane u metaboli~kim procesima osloba|a se odre|ena koli~ina energije, a ona se jednim delom pretvara u toplotu koja napu{ta ekosistem. Dakle, energija u obliku Sun~evog
zra~ewa ulazi u ekosistem, a iz wega izlazi u obliku toplote. Ovaj zna~ajan ekolo{ki proces naziva se proticawe i transformacija energije u ekosistemu
Osim kru`ewa materije i proticawa energije, svaki ekosistem ima jo{ dve veoma zna~ajne funkcionalne karakteristike. S jedne strane, svaki ekosistem poseduje veoma fine mahanizme samoregulacije koji mu omogu}uju da u dugom vremenskom periodu, bez obzira na uticaje iz okru`ewa, do izvesne mere odr`i nepromewen sastav svoje biocenoze. S druge strane, svaki ekosistem ima sposobnost i da se razvija, odnosno da pove}ava broj ~lanova svoje biocenoze, i da uslo`ava odnose i procese koji u wemu vladaju. Na kraju, ekosistemi se nalaze i u stalnom procesu evolucije. U prirodi se konstantno de{ava da tokom dugog vremena dolazi do razvoja biocenoze i biotopa, pa samim tim i do prirodnog prelaska jednog ekosistema u drugi.
Odnosi ishrane, kru`ewe materije, biogeohemijski ciklusi, proticawe energije, samoregulacija, razvoj i evolucija predstavqaju su{tinske i uvek prisutne funkcionalne karakteristike svakog ekosistema – bez obzira na to u kom delu planete se on nalazio.
1. Otvoreno jezero obrastaju mo~varne biqke.
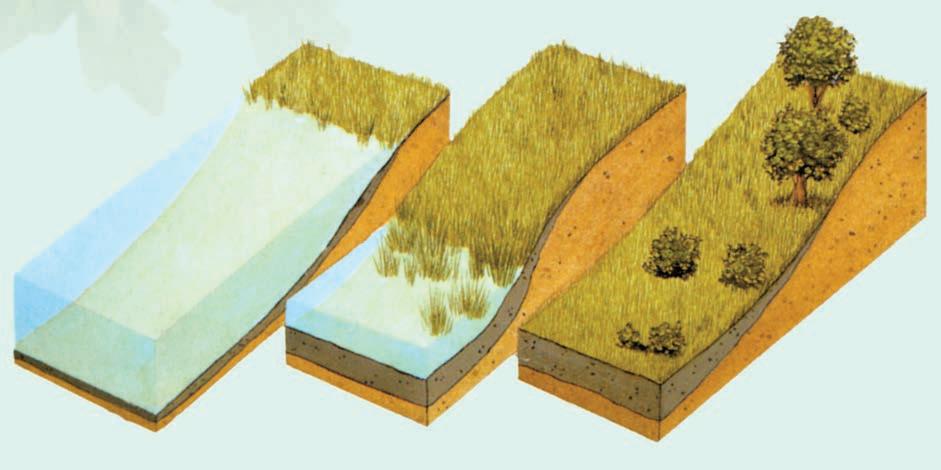
2. Jezero postaje pli}e, a mo~vara se {iri.
3. Trave i drve}e rastu na povr{ini koja je nekad bila jezero.
U toku dugog vremena evolucije jezerski ekosistem }e pre}i u kopneni
Osnovna priroda biosfere kao globalnog ekološkog sistema koji počiva na elementarnom funkcionisawu pojedinačnih ekosistema, predstavqa osnovnu paradigmu savremene zaštite životne sredine. U tom smislu, ekološko shvatawe pojma životne sredine je od suštinskog značaja. Ovo ekološko shvatawe ističe da životna sredina kao prostor u kom živi organizmi mogu da žive, mora da ispuni osnovni minimalan životni uslov, koji se može svesti na to da u woj uvek mora da bude dovoqno hrane. Da bi u nekoj sredini (= prostoru) uvek bilo dovoqno hrane, u woj moraju da budu prisutni: (i) organizmikoji proizvode hranu (proizvođači), (ii) neorganska materija od koje se hrana proizvodi, (iii) energija na račun koje se hrana proizvodi, (iv) organizmi koji obezbeđuju da se neorganska materija od koje se hrana proizvodi ne potroši (razlagači) i (v) organizmi koji kontrolišu procese proizvodwe i razgradwe hrane(potrošači). Da bi u toj sredini uvek bilo dovoqno hrane, ona mora konstatno da se proizvodi i konstantno da se troši, što znači da u woj energija, materija i živa bića moraju da budu funkcionalno povezani u dinamičan sistem koji egzistira na principima proizvodwe i razgradwe hrane, tj. na odnosima ishrane iz kojih proizilazi najznačajniji deo procesa kružewa materije, biogeohemijskih ciklusa i protoka i transforamcije energije u biosferi. Dakle, da bi neka SREDINA bila ŽIVOTNA SREDINA, ona mora funkcionisati kao EKOSISTEM koji u svakom trenutku živim bićima, koja u wemu žive, obezbeđuje osnovne uslove za život.
Svako `ivo bi}e u stani{tu u kojem `ivi izlo`eno je dejstvu razli~itih oblika ne`ive materije, klime, kao i dejstvu pojedinih ~lanova biocenoze. Svi oni zajedno predstavqaju ~inioce spoqa{we sredine koji deluju na `ivo bi}e i odre|uju uslove `ivota u wegovom stani{tu. Ti ~inioci spoqa{we sredine nazivaju se ekolo{ki faktori. Deoekološkihfaktorakojidelujunajednoživobićeuekosistemudolaziizspoqašwe neživeprirode. Tosu abiotičkifaktori (neorganskaiorganskamaterijairazličitioblici energije). Nasuprotwima,postojei biotičkifaktori,kojipredstavqaju drugaživabića, proizvo|ače, potrošače irazlagače izživotnezajednice. Nakraju, ivreme možeimati značajanuticajkakonapojedinačnaživabića, takoinaekosistemkaocelinu, takoda,pored abiotičkihibiotičkihfaktora, razlikujemoi istorijskifaktor
U jednom ekosistemu svi ekolo{ki faktori deluju celovito. To zna~i da na isto `ivo bi}e u jednom stani{tu u istom trenutku deluju i abioti~ki i bioti~ki faktori. Osim {to ekolo{ki faktori uti~u na sama `iva bi}a, oni uti~u i jedni na druge, mewaju}i se u mawoj ili ve}oj meri. To zna~i da su ekolo{ki faktori me|usobno uslovqeni. Na primer, pove}ana koli~ina Sun~evog zra~ewa dovodi do povi{ewa temperature u stani{tu. Povi{ewe temperature dovodi do pove}anog isparavawa vode, {to uslovqava pove}awe obla~nosti. A pove}ana obla~nost dovodi do smawewa koli~ine Sun~eve svetlosti u istom stani{tu.
Ekolo{ki faktori su promenqivi u prostoru i vremenu. Jedan isti faktor }e na razli~itim mestima i u razli~ito vreme imati razli~ite karakteristike. Na primer, temperatura u ju`nim i severnim predelima, ili u podno`ju i na vrhovima planina ima sasvim razli~ite vrednosti. A visina temperature se pravilno mewa kako tokom dana i no}i, tako i u toku jedne godi{we sezone.
Prema pravcu i smeru dejstva, razlikujemo tri tipa ekolo{kih faktora: akcije, reakcije i koakcije. Akcije su dejstva abiogenih faktora na `ivo bi}e, reakcije su dejstva `ivih bi}a na abiogene faktore, dok su koakcije najslo`eniji odnosi i predstavqaju me|usobna dejstva `ivih organizama u ekosistemu.
Razli~iti ekolo{ki faktori na razli~ite na~ine deluju na `iva bi}a. Prema vrsti uticaja na `iva bi}a, ekolo{ki faktori mogu delovati:
• na distribuciju vrsta u prostoru (distributivno dejstvo),
• na morfolo{ki izgled individua u ekosistemu (formativno dejstvo),
• na orijentaciju organizama ili wihovih delova u odnosu na pravac dejstva faktora (orijentaciono dejstvo),
• na fiziolo{ke procese individua u ekosistemu (fiziolo{ko dejstvo),
• na dinamiku sezonskih aktivnosti individua u ekosistemu (fenolo{ko dejstvo),
• na pona{awe individua u ekosistemu (etolo{ko dejstvo).
Abioti~ki faktori su veoma slo`eni i raznovrsni. Mogu se razvrstati na tri velike grupe –na klimatske, edafske i orografske, a unutar tih grupa – na niz pojedina~nih faktora.
Klimatski faktori odre |u ju osnovne karakteristike klime neke oblasti. A klima, kao skup vremenskih pojava i procesa koji karakterišu sredwe dugoro~no stawe atmosfere iznad neke oblasti, su{tinski uti~e na `iva bi}a i biocenoze. Mo`e se re}i da je op{ti karakter `ivog sveta u nekoj oblasti rezultat dugogodišweg dejstva klimatskih prilika.
Veliki broj razli~itih klimatskih elemenata u~estvuje u formirawu klime nekog podru~ja. Osnovni klimatski elementi su:
– Sun~evo zra~ewe i svetlost, – Zemqino izra~ivawe,
– du`ina trajawa Sun~evog sjaja,
– horizontalna vidqivost,
– temperatura vazduha,
– temperatura gorwih slojeva zemqišta,
– vla`nost vazduha,
– vla`nost gorwih slojeva zemqišta,
– vazdu{ni pritisak,
– isparavawe,
– obla~nost,
– visina padavina,
– visina i gustina sne`nog pokriva~a,
– pravac i brzina vetra.
Male u{i polarne lisice predstvaqaju prilago|enost na niske temperature na stani{tu. Velike u{i pustiwske lisice tako|e predstavqaju prilago|enost ali na visoku temperaturu na stani{tu.
Na zaslawenom zemqi{tu nema uslova za razvoj slo`enih {umskih ekosistema.
Prema neposrednom uticaju na `ivot `ivih bi}a u konkretnim ekosistemima, kao najzna~ajniji klimatski faktori izdvajaju se: Sun~evo zra~ewe i svetlost, temperatura, vla`nost i vetar
Sun~evo zra~ewe predstavqa vid prostirawa energije elektromagnetskih titraja koji nastaju u procesu nuklearnih reakcija koje se neprekidno odvijaju na Suncu. Energija Sun~evog zra~ewa se izra~uje i rasprostire sa Sunca u vidu odeqenih ~estica — kvanta ili fotona, ~ija je energija odre|ena brzinom wihovog kretawa i frekvencijom wihovih talasa.
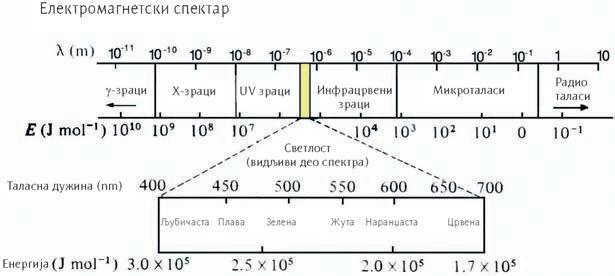
Elektromagnetni spektar Sun~evog zra~ewa
Sun~evizracikojise od svogizvora,Sunca, prostiru u svimpravcimaimajuveomaslo`en spektralnisastav. Razli~iti kvantise kre}u razli~itom brzinom i imaju razli~itefrekvencijetalasa, pau~estvuju u izgradwirazli~itihdelova spektra Sun~evogzra~ewa. Zbograzlika u brzinikretawa i frekvencijamatalasa, razli~iti delovi spektra Sun~evog zra~ewa nose razli~itekoli~ine energije. Tako,visokofrekventni γ-zraci, x-zracii UV-zracinoseizuzetnovelikukoličinuenergije,dok,nasuprotwima,niskofrekventnidugotalasnimikroi radio-talasinosemalekoličineenergije. U središwojzonifrekvencija(izme|u400 i 700 nm) nalazisetakozvanividqivideospektra,koji,ustvari,predstavqa svetlost Sun~evozra~eweje osnovniizvorenergije, odkojezavisegotovosvi`ivotniprocesina planetiZemqi. S jednestrane,energijaSun~evogzra~ewase, u kontaktu s razli~itimtelimana povr{iniZemqe, transformi{e u toplotnuenergiju kojazagrevaatmosferu i povr{inskedelovevode i zemqi{ta.Beztetoplotneenergije`ivabi}anaZemqinebimogladaobavqaju svojebiohemijske i fiziolo{keprocese,{tozna~ida`ivotnana{ojplanetinebibiomogu}. S drugestrane,zelenebiqkesurazvilesposobnostdaenergijuvidqivogdelaspektraSun~evag zra~ewa(energijusvetlosti) transformi{u i akumuliraju u viduenergijehemijskihveza u hranikojuproizvode u procesufotosinteze.Nara~untehemijskeenergijeakumulirane u hranisvaostala`ivabi}anana{ojplanetiostvarujusvoje`ivotneaktivnosti.
Poredpozitivnog, Sun~evozra~ewemo`eimatiiveomanegativnodejstvona`ivabi}a. Visokofrekventni UV-zraci,zbogogromnekoličineenergijekojunose,imaju destruktivno dejstvonaživabića.U kontaktusa UV zracimaraskidajusehemijskevezeidolazidodezintegracijeslo`enihvisokoorganizovanihorganskihmolekulakao{tosuribonukleinske kiselineiproteini.Todovodidobrzogzaustavqawa`ivotnihprocesaismrtiorganizama–ukolikosudu`eizlo`enidejstvu UV zraka.
Radijacijakoja dolazidogranice atmosfere
Odbijawe odoblaka
Preno{ewetoplotenara~un
Kratkotalasneradijacije
Dugotalasneradijacije
Turbulentnerazmene Promeneagregatnog stawavode Molekularnetermi~ke provodqivosti
Difuznorasejavawe Apsorbovawe
Efektivnoizra~ivawe Isparavawe
Rasejana radijacijaneba
Aktivnapovr{ina
Isparavawe
Turbulentnarazmena
Radiacionapseudotermi~ka provodqivost
Toplotnaprovodqivost
Toplotakojase prenosiuzemqi{te
Efektivnoizra~ivawe
Kontrola–izra~ivawe
Turbulentna razmena
Radiaciona pseudotermi~ka provodqivost
Toplotnaprovodqivost Stvarawerose
Aktivnapovr{ina
Toktemperatureiz dubinezemqi{ta
NasvomputuodSuncadopovr{ineZemqeSun~evizraciprolazekrozrazli~itesredine, pri~emusemewawihovspektralnisastavismawujekoli~inaenergijekojunose. Naro~ito velikepromenesede{avajuprilikomprolaskaSun~evihzrakakrozZemqinuatmosferu.Ve} unajvi{imdelovimaatmosfere,uzonigdesenalazevelikekoli~ineozona(ozonski omota~),dolazidogotovopotpuneapsorpcije UV zraka.Zbogtogaovi{tetnizracigotovo uop{tenedopirudo povr{ineZemqe,na kojojseodvija`ivot. Nasvomdaqemputu krozatmosferudolazidoznatnograsipawaSun~eveenergije.Jedandeoteenergije(oko42%)odbija seodoblakaidrugih ~esticaivra}anazad uvasionu.Drugideo energije(oko15%)apsorbujumolekulivode,ugqen-dioksidai dr.,takodadopovr{ineZemqestigne oko43%Sun~evogzra~ewakojejeu{lou atmosferu.Osimtoga,
RasipaweenergijeSun~evogzra~ewakrozatmosferu
samo jedan deo tog zra~ewa (oko 27%) do povr{ine Zemqe sti`e u obliku direktnog zra~ewa, dok preostali deo (oko 16%) sti`e u obliku difuzne svetlosti.
Zna~ajne promene u koli~ini i sastavu Sun~evog zra~ewa de{avaju se i pri prolasku Sun~evih zraka kroz same ekosisteme. Tako, u slo`enim {umskim ekosistemima najve}i deo svetlosti se zadr`ava u zoni gustih kro{wi, dok mawi deo (ponekad samo 1–2%) dolazi do sprata zeqastih biqaka.
Temperatura je fizi~ki parametar koji odre|uje toplotno stawe tela, odnosno mera kojom se utvr|uje koli~ina toplotne energije koju neko telo poseduje. Svako telo na Zemqi poseduje odre|enu koli~inu toplote, koja, u stvari, predstavqa energiju kretawa molekula („molekularnu energiju”) od kojih je to telo izgra|eno. Postoji nekoliko izvora energije koji zagrevaju na{u planetu i odr`avaju temperaturni balans neophodan za odvijawe `ivotnih procesa svih `ivih bi}a na Zemqi. Zemqino jezgro je jo{ uvek usijano i iz wega prema povr{ini neprekidno zra~i odre|ena koli~ina toplotne energije. Vulkanske erupcije koje se odvijaju naro~ito na dnu dubokih okeana tako|e osloba|aju velike koli~ine toplotne energije. Prirodni i ve{ta~ki po`ari, koji su u nekim delovima sveta redovna pojava, predstavqaju dodatni izvor toplote. Na kraju, i Sun~evo zra~ewe predstavqa jedan od izvora toplote na Zemqi.
Me|u navedenim izvorima toplotne energije Sun~evo zra~ewe ima apsolutno najve}i zna~aj za zagrevawe Zemqe. Energija Sun~evog zra~ewa se u kontaktu sa razli~itim telima na povr{ini Zemqe, transformi{e u toplotnu energiju, koja potom po~iwe da zra~i kroz atmosferu nazad prema vasioni. Me|utim, zbog prisustva razli~itih molekula i ~estica u atmosferi, kao i zbog same dugotalasne prirode toplotnog zra~ewa, toplota nastala na ra~un Sun~evog zra~ewa nikada ne napu{ta atmosferu u potpunosti. Na svom putu ka vasioni znatan deo izra~ene toplote se odbija od razli~itih molekula u atmosferi (pre svega od molekula ugqen-dioksida) i vra}a nazad prema povr{ini Zemqe. Na taj na~in atmosfera neprekidno zadr`ava odre|enu
U atmosferi se neprekidno odvija prirodan efekat staklene ba{te.
koli~inu toplotne energije neophodne za odvijawe `ivota na na{oj planeti. Ovaj prirodni fenomen da atmosfera propu{ta kratkotalasno Sun~evo zra~ewe, a zadr`ava dugotalasno toplotno izra~ivawe, pri ~emu se ona zagreva, naziva se efekat staklene ba{te Koli~ina toplotne energije, koja se izra`ava preko temperature sredine (temperatura vode, vazduha ili zemqi{ta) u kojoj `iva bi}a `ive, predstavqa jedan od najbitnijih ekolo{kih faktora. Razlog tome le`i u ~iwenici da se svi vitalni biohemijski i fiziolo{ki procesi mogu odvijati samo u odre|enom opsegu temperature, odnosno u prisustvu odre|ene, ni suvi{e male, ali ni suvi{e velike koli~ine toplotne energije. Tako, na niskim temperaturama (u uslovima male koli~ine toplotne energije) zamrzava se voda u }elijama i tkivima, zbog ~ega se prekidaju biohemijske reakcije koje se odvijaju u vodenoj sredini `ivih }elija. Nasuprot tome, na visokim temperaturama (u uslovima prevelike koli~ine toplotne energije) raskidaju se hemijske veze u slo`enim visokoorganizovanim organskim molekulima, pre svega u proteinima, zbog ~ega se tako|e, prekidaju biohemijske reakcije koje se odvijaju u `ivim }elijama.
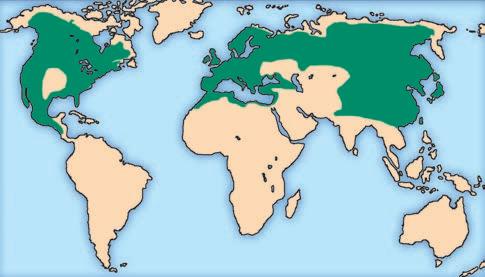
1
2
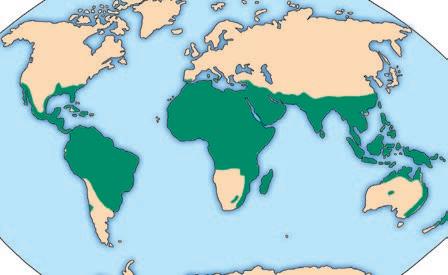
Temperatura ima presudan zna~aj na rasporstrawewe ~etinara (1) i palmi (2).
Temperatura na razli~ite na~ine deluje na `iva bi}a. Rasprostrawewe vrsta u prostoru neposredno zavisi od temperature, pa se ka`e da ona ima distributivno dejstvo. Dimenzije tela i wegov oblik ili forma neposredno zavise od temperature stani{ta, tako da ona na `iva bi}a deluje i formativno. Od temperature zavisi i u kom pravcu i kojim intenzitetom
pre 16. IV 16-30. IV 1-15. V 16-30. V 1-15. VI posle 16. VI
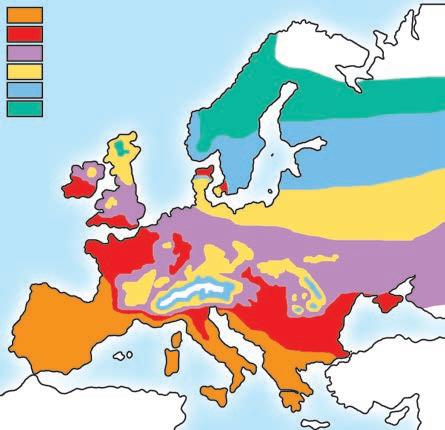
U zavisnosti od temperature u razli~itim delovima Evrope jorgovan po~iwe da cveta u razli~ito doba godine.
Intenziteti fotosinteze i }elijskog disawa direktno zavise od temperature.
}e se odvijati razli~iti fiziolo{ki procesi, pa zbog toga temperatura kao ekolo{ki faktor ima i fiziolo{ko dejstvo. Osim toga, po~etak i trajawe razli~itih faza u sezonskim aktivnostima `ivih bi}a neposredno zavise od temperature stani{ta, {to ukazuje i na znatno fenolo{ko dejstvo ovog faktora.
Voda je jedna od najinteresantnijih pojava u prirodi. Iako spada me|u najjednostavnija jediwewa, ona je neophodan preduslov `ivota. @ivot je nastao u vodi i u woj se razvijao milijardama godina. I pored mnogih slo`enih prilago|enosti na suvozemne uslove, na kopnu `ivot ne mo`e opstati tamo gde nema makar i minimalne koli~ine vode.
Zna~aj vode za `ivot organizama je ogroman. Voda je osnovni gradivni element `ivih bi}a. Tela najve}eg broja organizama sadr`e od 80 do 95% vode. Voda je izvanredan rastvara~. U woj se rastvaraju mineralne materije, gasovi, kiseonik i ugqen-dioksid. Zbog toga {to predstavqa idealnu sredinu za odvijawe hemijskih reakcija na kojima po~iva `ivot, voda sa~iwava oko 85% }elijske citoplazme. Voda odr`ava strukturu organizma. U svakoj }eliji ona vr{i stalni pritisak na }elijske membrane i zidove. Tako uti~e na formirawe oblika i strukture }elija, a samim tim i na odr`avawe strukture tkiva, organa i ~itavog organizma. Voda je jedna od osnovnih komponenata za proizvodwu hrane.Zelene biqke u procesu fotosinteze od vode i ugqen-dioksida proizvode organske materije, koje predstavqaju hranu za ostale organizme na Zemqi.
hidrofite higrofite mezofite kserofite
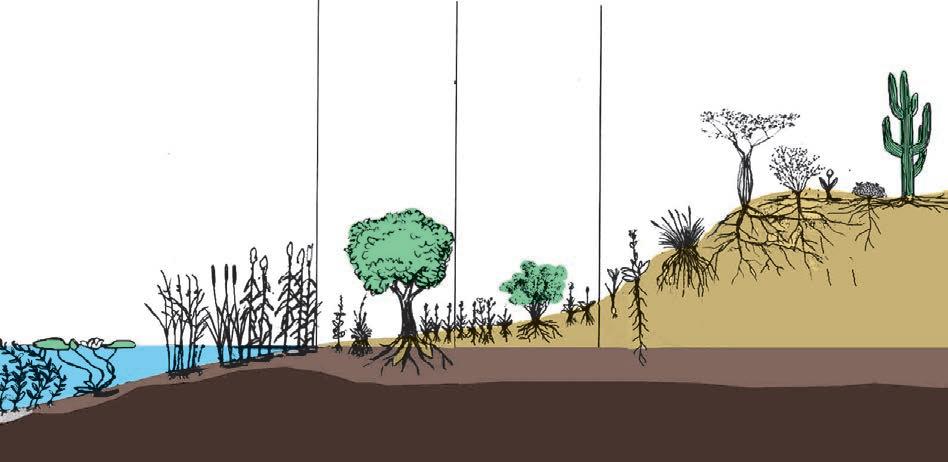
I voda ima zna~ajno distributivno dejstvo. U zavisnosti od koli~ine vode u podlozi i na veoma malom prostoru dolazi do razvoja razli~itih ekosistema.
Budu}i da voda, u zavisnosti od temperature, mo`e da mewa svoja agregatna stawa (te~no–gasovito–~vrsto), ona se nalazi u neprekidnom kretawu i kru`ewu izme|u atmosfere, litosfere i hidrosfere. Zbog toga promena koli~ine vode u stani{tu, kao i dinamika wenog prelaska u razli~ita agregatna stawa veoma variraju od mesta do mesta, pa voda, uz temperaturu i svetlost, predstavqa jedan od najzna~ajnijih ekolo{kih (klimatskih) faktora.
Dinamika promene koli~ine i agregatnog stawa vode u stani{tu naziva se vodni re`im staništa. U kopnenim ekosistemima razlikuju se vodni re`im vazduha i vodni re`im zemqi{ta.
Voda u vazduhu poreklom je od isparene vode sa povr{ine zemqe. Isparavawe vode mo`e biti ~isto fizi~ki proces – evaporacija, kada usled visoke temperature voda iz te~nog
prelazi u gasovito agregatno stawe. Osim evaporacijom, voda iz te~nog mo`e pre}i u gasovito stawe i u procesu transpiracije, koji predstavqa fiziolo{ki proces isparavawa vode iz biqaka. Ukupna koli~ina vode ispari, fizi~ki i fiziolo{ki, u procesu koji se naziva evapotranspiracija
Koli~ina vode u vazduhu (vla`nost) zavisi i od niza drugih klimatskih faktora. Osim od temperature, stepen isparavawa zavisi i od parcijalnog pritiska vodene pare u vazduhu, barometarskog pritiska vazduha, povr{ine sa koje voda isparava, kao i od pravca i brzine vetra. Vla`nost vazduha prema navedenim klimatskim faktorima stoji u slede}oj relaciji:
• sa povi{ewem temperature dolazi do pove}awa isparavawa,
• povi{en parcijalni pritisak vodene pare u vazduhu dovodi do smawewa isparavawa,
• povi{en barometarski pritisak vazduha dovodi do smawewa isparavawa,
• pove}awem povr{ine sa koje voda isparava dolazi do pove}awa isparavawa,
• pove}awe brzine vetra dovodi do pove}awa isparavawa.
Voda u zemqi{tu poreklom je od atmosferske vode, tj. od padavina koje se stvaraju na zemqi (rosa, slana, iwe, poledica) ili od padavina koje dolaze iz oblaka (ki{a, sneg, krupa, sugradica, grad).
Kada voda dospe do zemqi{ta, ono je upija. Ukoliko se zemqi{te nalazi na nagnutom terenu, voda jednim delom oti~e wegovom povr{inom u ni`e predele. Deo vode koji je zemqi{te upilo usled sila gravitacije se proce|uje, odlazi u podzemne kanale i formira sistem podzemnih voda, drugi deo ispari, a tre}i deo upiju biqke svojim korenovima. Preostali deo vode ostaje u zemqi{tu zahvaquju}i dejstvu razli~itih sila molekularnog privla~ewa koje vladaju izme|u ~estica zemqi{ta. Upravo zbog dejstva ovih sila zemqi{te ima sposobnost da zadr`ava vodu, koja bi, u protivnom, u potpunosti isparila ili se ocedila u sistem podzemnih voda.
Koli~ina vode u zemqi{tu zavisi od vi{e faktora. Kao najzna~ajniji mogu se izdvojiti: koli~ina padavina, nagib terena, razvijenost biqnog pokriva~a i fizi~ko-hemijske karakteristike samog zemqi{ta.
Vetar predstavqa kretawe vazduha koje nastaje usled pojave razlika u atmosferskom pritisku na razli~itim delovima povr{ine Zemqe. Po svojoj prirodi vetrovi mogu biti: stalni (pasati, zapadni i polarni isto~ni vetrovi), periodi~ni (monsuni) i lokalni (ko{ava, bura, vardarac, jugo, fen).
Ekolo{ki zna~aj vetra, kako na globalnom, tako i na lokalnom nivou, veoma je veliki. Stalni globalni vetrovi dovode do neprekidnog strujawa atmosfere i do me{awa vazdu{nih masa u pravcima tropi–polovi, more–kopno, ni`i–vi{i delovi atmosfere. Neprekidno kretawe vazduha u pomenuta tri pravca, izme|u ostalog, omogu}uje ciklus kru`ewa vode, bez kojeg `ivot na na{oj planeti u ovom obliku te{ko da bi bio mogu}.
Na lokalnom nivou vetar neposredno ili posredno uti~e na gotovo sve ostale ekolo{ke abioti~ke faktore. Od pravca i intenziteta vetra neposredno zavise stepen isparavawa vode, temperatura, kao i stepen erozije zemqi{ta (eolska erozija). Posredno, preko uticaja na kretawe oblaka i pojavu obla~nosti, vetar uti~e i na koli~inu Sun~evog zra~ewa i svetlosti koja }e dospeti do povr{ine Zemqe, kao i na koli~inu padavina koje }e se izlu~iti u
nekoj oblasti. Tako od prirode vetrova u nekoj oblasti u velikj meri zavise karakteristike osnovnih ekolo{kih faktora: Sun~evog zra~ewa, temperature, vla`nosti i zemqi{ta.
Osim {to veoma bitno uti~e na karakteristike abioti~kih uslova u stani{tu, vetar neposredno uti~e i na ~itav niz osobina `ivih bi}a od kojih se sastoje biocenoze, odnosno sami ekosistemi. Na mestima gde sna`ni vetrovi stalno duvaju u istom smeru pojavquju se veoma specifi~ne forme biqaka (forma zastave, forma jastuka), koje su na anatomskom i morfolo{kom nivou potpuno prilago|ene destruktivnom mehani~kom dejstvu vetra. Mnoge biqke „koriste” vetar za opra{ivawe (anemofilija) ili rasejavawe (anemohorija), tako da razmno`avawe mnogih ~lanova biocenoze zavisi od vetra. Pored toga, uti~u}i na transpiraciju vetar deluje i na ~itav niz fiziolo{kih aktivnosti biqaka u biocenozi.
Edafski faktori odre|uju osnovne karakteristike zemqi{ta. Obuhvataju fizi~ke, hemijske i biolo{ke karaktertistike zemqi{ta, kao i karakteristike stena na kojima se zemqi{te formira.
Zemqište je površinski deo litosfere, koji je pod uticajem biosfere, atmosfere i hidrosfere stekao jedinstveno kvalitativno svojstvo – plodnost, tj. sposobnost da snabdeva biqke vodom, mineralnim materijama i kiseonikom. Istovremeno, zemqište je i neobi~na biološka laboratorija u kojoj se neprekidno ra|aju, `ive i umiru bezbrojne populacije organizama, koje uti~u na stvarawe, razvoj i plodnost samog zemqišta. Tako zemqište predstavqa stanište milionima razli~itih vrsta biqaka, `ivotiwa, gqiva i mikroorganizama. Prema mišqewima nekih istra`iva~a, u humusnim slojevima zemqišta `ivi najve}i broj razli~itih vrsta `ivih bi}a u odnosu na sve ostale tipove stani{ta na Zemqi!!!
Zemqi{te svojim karakteristikama bitno odre|uje strukturne i funkcionalne karakteristike ~itavog ekosistema. Od sastava i strukture zemqišta zavisi koliki }e biti nivo slo`enosti fitocenoze, a preko we – i ~itave biocenoze. Svojim fizi~kim, hemijskim i biološkim sastavom zemqište odre|uje i intenzitet metabolizma ekosistema. S jedne strane, od plodnosti zemqi{ta zavisi koliko }e zelene biqke proizvesti organske materije (fotosinteza – produkcija ekosistema) koji }e na raspolagawu imati ostali ~lanovi ekosistema. S druge strane, od aktivnosti `ivih bi}a u zemqi{tu (mikrofaune, gqiva i mikroorganizama) neposredno zavisi kojom brzinom i u kojim koli~inama }e se odvijati proces razgradwe organske materije. Na taj na~in zemqi{te ima jednu od kqu~nih uloga u kru`ewu materije u ekosistemu.
U orografske faktore spadaju slede}e karakteristike reqefa: nadmorska visina, nagib terena i okrenutost prema odre|enoj strani sveta (ekspozicija). Ti faktori ne deluju neposredno na `iva bi}a. Oni mewaju klimatske karakteristike stani{ta, pa su samim tim od velikog zna~aja.
Sa pove}awem nadmorske visine pravilno opada temperatura, a sa promenom nagiba terena i wegove okrenutosti prema razli~itim stranama sveta mewa se i koli~ina Sun~evog
zra~ewa i svetlosti u samom stani{tu. Stani{ta okrenuta prema jugu primaju mnogo vi{e Sun~evog zra~ewa nego ona koja su okrenuta prema severu. Zbog toga su ju`ne padine toplije i suvqe, pa je i sastav `ivog sveta na takvim stani{tima druga~iji u odnosu na `ivi svet padina koje su okrenute severu.
Dejstvaživihbićakaobiotičkihfaktorasutakođeveomasloženairaznovrsna. Delese natriosnovnegrupe: uzajamneuticajeoraganizama, uticaje čoveka i uticaježivihbića naspoqašwuneživusredinu
Uzajamni uticaji izme|u organizama predstavqaju najslo`enije odnose koji vladaju u ekosistemu. Odnosi ishrane izme|u ~lanova biocenoze predstavqaju jedan od osnovnih i najva`nijih tipova odnosa koji vladaju u ekosistemu. Kroz odnose ishrane ostvaruje se kru`ewe materije u ekosistemu. Me|utim, osim odnosa ishrane, u svakoj biocenozi postoji jo{ mnogo razli~itih vrsta odnosa, koji su vezani za probleme stanovawa, razmno`avawa, rasejavawa ili raseqavawa ~lanova `ivotne zajednice. O tim odnosima bi}e vi{e re~i kasnije.
Savremeni uticaj ~oveka na biqni i `ivotiwski svet, kao i na prirodu u celini na planeti Zemqi veoma je veliki. Zbog toga se dejstvo ~oveka na ostali `ivi i ne`ivi svet u prirodi izdvaja kao poseban antropogeni ekolo{ki faktor i wemu je posve}eno posledwe poglavqe ovog uxbenika.
Mo`da bi na prvi pogled neko mogao re}i da svojstva ne`ive prirode – mora, okeana, vazduha, vetra, stena ili planina – ne zavise od `ivih bi}a. Me|utim, uticaj `ivih bi}a na spoqa{wu ne`ivu sredinu u prirodi je stalan i u nekim slu~ajevima ima veoma veliki zna~aj. Sav kiseonik i najve}i deo ugqen-dioksida u atmosferi i vodi stvorili su `ivi organizmi – proizvo|a~i, potro{a~i i razlaga~i. Ogromne naslage kre~wa~kih stena, od kojih su izgra|eni i najvi{i vrhovi Himalaja, nastale su vekovnim talo`ewem qu{turica mikroskopskih ~lanova biocenoza mor skih i okeanskih ekosistema. Velike naslageugqaibogataležištanaftei prirodnoggasa, tako|esunastalidelovawem živihbića, itozelenihdrvenastihbiqakai marinskogplanktona,kojisuživeliudalekojprošlosti.
Najvi{e kre~wa~ke planine izgra|ene su od stena koje su nastale talo`ewem qu{turica morskih planktonskih organizama.
@ivot je gotovo sigurno nastao u morskoj vodi, i to u priobalnim delovima toplih mora u vremenu velikih vulkanskih erupcija i intenzivnog Sun~evog zra~ewa. Prvobitni organizmi su bili veoma jednostavni. To su bila jedno}elijska bi}a koja su uspevala da opstanu u ekolo{kim uslovima stani{ta potpuno druga~ijim nego danas. Kako je vreme prolazilo, tela prvobitnih organizama su postajala sve slo`enija. Nastali su prvi kolonijalni, a za wima i prvi prosti vi{e}elijski organizmi. Pojavile su se prve biqke, `ivotiwe i gqive. Evolucija je krenula u pravcu uslo`avawa strukture i funkcije `ivih organizama, {to je uslovilo i sve efikasnije kori{}ewe resursa `ivotne sredine. Uporedo sa uslo`avawem tela i sve efikasnijim kori{}ewem resursa `ivotne sredine, neprekidno su osvajani i novi `ivotni prostori. Po kretqivost, kao jedna od osnovnih osobina `ivih bi}a, omogu}ila je prvobitnim organizmima da po~nu da naseqavaju nova stani{ta. Me|utim, ta nova stani{ta su bila druga~ija. Ekolo{ki uslovi koji su u wima vladali ponekad su bili drasti~no druga~iji od onih u kojima su organizmi prethodno `iveli. Pojavili su se novi ekolo{ki problemi koje je trebalo re{iti. Da bi u tim novim uslovima mogli da opstanu, organizmi su morali da se prilagode. Zapo~eo je proces ekolo{kog prilago|avawa novim uslovima stani{ta.
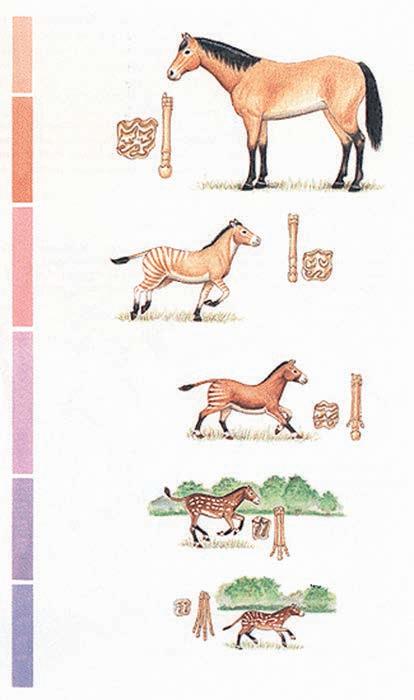
3 miliona godina
7 miliona godina
25 miliona godina
40 miliona godina
60 miliona godina
Na osnovu fosilnih ostataka utvr|eno je da je najprimitivniji predak dana{weg kowa Echippus `iveo pre {ezdeset miliona godina. Wegovom evolucijom nastale su jo{ tri vrste Miohippus, Meryhippus i Pliohippus koje su tako|e izumrle. Na kraju pre oko tri miliona godina pojavio se savremeni kow Equus
Ekolo{ki problemi koje je trebalo re{avati nisu se javqali samo sa osvajawem novih stani{ta i ulaskom u nove ekolo{ke situacije. Prirodne ekolo{ke promene javqale su se i u jednom istom stani{tu tokom vremena. Organizmi se nisu selili, ali su se ekolo{ki uslovi u wihovoj `ivotnoj sredini mewali. I u tom slu~aju `iva bi}a su morala da se prilago|avaju promenama ekolo{kih uslova spoqa{we sredine.
Sposobnost ekolo{kog prilago|avawa promenama uslova spoqa{we sredine postala je preduslov opstanka i jedna od novih kvalitativnih osobina koja je odvajala `iva bi}a od ne`ivih.
Danas, vi{e od tri i po milijarde godina posle nastanka `ivota, `iva bi}a su naselila gotovo ~itav prostor planete Zemqe i prilagodila se najrazli~itijim ekolo{kim uslovima
Predwi ekstremiteti slepih mi{eva i ptica, iako veoma razli~iti omogu}ili su ovim organizmima da postanu savr{eni leta~i.
spoqa{we sredine. Razli~ite vrste su prona{le re{ewa za uspe{an `ivot u mnogim stani{tima {irom sveta – od najvi{ih planinskih vrhova, do najve}ih morskih dubina. Raznovrsnost ekolo{kih prilika u stani{tima koja danas naseqavaju `iva bi}a na Zemqi je ogromna, pa su, naravno, i re{ewa ekolo{kih problema do kojih su razli~ite vrste do{le veoma razli~ita. Zbog toga je raznovrsnost oblika i funkcija dana{wih organskih vrsta gotovo neverovatna.
Nijedan organizam ne mo`e da bude istovremeno prilago|en svim razli~itim `ivotnim uslovima koji vladaju na Zemqi. Svako `ivo bi}e mo`e da opstane samo u okviru odre|enih granica promena ekolo{kih faktora. Raspon promena pojedinih ekolo{kih faktora u okviru kojih je mogu} opstanak pojedinih organskih vrsta naziva se ekolo{ka valenca [irina ekolo{ke valence ozna~ava veli~inu promenqivosti nekog ekolo{kog faktora koju mogu da podnesu jedinke jedne vrste. Razli~iti organizmi imaju i razli~itu {irinu ekolo{ke valence za razli~ite ekolo{ke faktore. Tako postoje eurivalentni organizmi, koji podnose {iroko varirawe ekolo{kih faktora, i stenovalentni organizmi, koji imaju veoma uske ekolo{ke valence.
Iako ekolo{ki faktori deluju celovito i me|usobno se uslovqavaju, ponekad samo jedan ekolo{ki faktor mo`e da ima odlu~uju}u ulogu za `ivot odre|enog organizma. Tada taj faktor postaje ograni~avaju}i ili limitiraju}i faktor, koji mo`e da ugrozi ili potpuno onemogu}i `ivot tog organizma. Na primer, koli~ina soli u podlozi po pravilu predstavqa limitiraju}i faktor. Na zaslawenim stani{tima, bez obzira na povoqne ili ~ak optimalne klimatske uslove, velika koli~ina soli u zemqi{tu onemogu}ava `ivot mnogim biqkama.
Karakteristi~ne osobine koje `ivim bi}ima omogu}uju opstanak u specifi~nim ekolo{kim uslovima stani{ta nazivaju se adaptacije ili adaptivne karakteristike. One predstavqaju evolutivni rezultat dugotrajnog procesa ekolo{kog prilago|avawa organizama specifi~nim uslovima spoqa{we sredine. Adaptacije, kao osobine koje omogu}uju opstanak u specifi~nim uslovima spoqa{we sredine, zapisane su u geneti~koj osnovi svakog organizma.
Adaptacije se, pre svega, ispoqavaju na morfolo{kom nivou. Lako je uo~iti da je kaktus oblikom svoga tela morfolo{ki adaptiran na uslove ekstremne su{e u pustiwi. Me|utim, adaptacije se mogu ispoqiti i na fiziolo{kom nivou. U pustiwama ne `ive samo kaktusi. U wima se mogu na}i i naizgled obi~ne biqke koje `ive i izvan pustiwskih ekosistema. Te biqke nisu adaptirane na morfolo{kom nivou. Ali na~in wihovog funkcionisawa je veoma
specifi~an. Na~in na koji vr{e fotosintezu ili na~in na koji ~uvaju vodu je druga~iji. One su se adaptirale na fiziolo{kom nivou.
Svako `ivo bi}e je adaptirano na uslove spoqa{we sredine u kojoj `ivi. Da nije tako, ono jednostavno ne bi moglo da opstane. Me|utim, ~esto se u prirodi mo`e videti da jedna ista jedinka, ukoliko je pokretna i ukoliko tokom svog kretawa dolazi u razli~ita stani{ta, mewa svoj izgled. Sli~no je i sa sesilnim organizmima. Ukoliko u toku sezone do|e do zna~ajnijih promena u uslovima spoqa{we sredine, i oni mogu zna~ajnije izmeniti svoj op{ti izgled. Te kratkotrajne morfolo{ke promene nazivaju se modifikacije.Za razliku od adaptacija, one su neobavezne i nestalne, a traju onoliko dugo koliko traje i izmeweni uticaj spoqa{weg faktora.
Modifikacije – na mestima intenzivnog ga`ewa (1) pti~ji troskot je nizak i zbijen, dok je na mestima gde odsustvuje ga`ewe biqka je izdu`ena i puze}a (2).
Skup svih adaptivnih karakteristika jednog organizma predstavqa `ivotnu formu te vrste. S obzirom na ogromnu raznovrsnost stani{ta na Zemqi i ogroman broj re{ewa do kojih su do{li razli~iti organizmi, jasno je da je danas mogu}e prepoznati i izuzetno veliki broj razli~itih `ivotnih formi. Me|utim, kao {to je u sistematici na osnovu pojedinih karak-
Ekolo{ka divergencija – ekolo{ka konvergencija. Bezlisno bodqikavo telo mle~ike (1) i kaktusa (2) savr{eno je prilago|eno `ivotu u pustiwama. Samo kada su u fazi cvetawa mle~ika (3) i kaktus (4) mogu se lako razlikovati. U povoqnim klimatskim uslovima `ive „normalne" listolike mle~ike (5) i listoliki kaktusi (6).
tera, mogu}e grupisati milione razli~itih vrsta u nekoliko osnovnih carstava, tako se i sve `ivotne forme mogu razvrstati u nekoliko osnovnih grupa. Na primer, jedna od naj{ire prihva}enih klasifikacija `ivotnih formi kopnenih biqaka zasnovana je na polo`aju pupoqaka, odnosno izdanaka za vreme nepovoqnog (miruju}eg) perioda godine, bilo da je re~ o hladnom periodu u umerenom, bilo o su{nom periodu u tropskom i suptropskom pojasu. Prema toj klasifikaciji sve kopnene biqke se na (prvom nivou klasifikacije) grupi{u na: – fanerofite (phanerophyta – drve}e i grmqe), biqke sa pupoqcima koji se nalaze na odrvenelim delovima stabala na ve}oj visini od povr{ine zemqe, – hamefite (chamaephyta – niski `bunovi), niske `bunaste biqke sa pupoqcima koji se nalaze na odrvenelim delovima stabala na maloj visini od povr{ine zemqe, – hemikriptofite (hemicryptophyta – vi{egodi{we zeqaste biqke), biqke sa pupoqcima koji se u toku nepovoqnog perioda godine nalaze u osnovi zeqastih stabala na samoj povr{ini zemqe, – geofite (geophyta – vi{egodi{we zeqaste biqke sa podzemnim vegetativno-reproduktivnim organima), biqke sa pupoqcima koji se nalaze na podzemnim organima (krtole, rizomi, lukovice), – terofite (terophyta – jednogodi{we zeqaste biqke), biqke koje nepovoqan period godine pre`ivqavaju u obliku semena, – hidrofite (hydrophyta – vodene zeqaste biqke), biqke koje nepovoqan period godine pre`ivqavaju u obliku semena, turiona ili podzemnih organa pod vodom.
Svaka od navedenih osnovnih `ivotnih formi biqaka se, u odnosu na druge specifi~ne adaptivne karakteristike, razvrstava na ni`e kategorije. Tako, na primer, u odnosu na tip podzemnih organa, geofite se dele na: – geofite sa korenskim pupoqcima (geophyta radicigemmata), – geofite sa lukovicom (geophyta bulbosa), – geofite sa krtolama (geophyta tuberosa), – geofite sa rizomima (geophyta rhyzomathosa). I u okviru tih ni`ih kategorija mogu}e je uo~iti znatne razlike u na~inu pre`ivqavawa, pa se i one mogu podeliti na nekoliko jo{ ni`ih potkategorija.
Iako su pokretne, {to zna~i da lak{e nego biqke mogu izbegavati nepovoqne uslove spoqa{we sredine, i me|u `ivotiwama se mogu uo~iti nizovi adaptacija koje se mogu prepoznati kao specifi~ne `ivotne forme. Tako, na primer, bez obzira na udaqene filogenetske veze, sve kopnene `ivotiwe se, u odnosu na tip stani{ta, mogu razvrstati na slede}e osnovne `ivotne forme: – edafobionte (stanovnici tla), – atmobionte (`ivotiwe koje `ive na biqkama i drugim `ivotiwama) i – aerobionte (`ivotiwe koje veliki deo `ivota provode u vazduhu).
Kao i `ivotne forme biqaka, i osnovne `ivotne forme `ivotiwa mogu se podeliti na ~itav niz ni`ih potkategorija. Tako se edafobionti, u odnosu na fizi~ke karakteristike tla u kome `ive, razvrstavaju na: pelobionte – stanovnike muqa, psamobionte – stanovnike peska, geobionte – stanovnike zemqi{ta, litobionte – stanovnike pukotina stena i troglobionte – stanovnike pe}ina.
S obzirom na to da `ivotna forma predstavqa odgovor na uslove spoqa{we sredine, ona je i veoma dobar ekolo{ki indikator. U razli~itim klimatskim i ekolo{kim zonama dominiraju vrste razli~itih `ivotnih formi. Tako, na primer, na mestima gde dominiraju fanerofite (drve}e) vladaju povoqni ekolo{ki uslovi, dok su na mestima gde dominiraju terofite (jednogodi{we zeqaste biqke) uslovi za `ivot znatno nepovoqniji.
Sa promenom klimatskih uslova stani{ta javqaju se pravilne promene u izgledu i proporcijama razli~itih delova tela u okviru jedne iste `ivotne forme. Te promene ulaze u skup ekolo{kih pravila, me|u kojima su najzna~ajnija dva – Bergmanovo i Alenovo pravilo. Bergmanovo pravilo odnosi se na prilago|enost toplokrvnih `ivotiwa (sisara i ptica) temperaturi stani{ta. Prema tom pravilu, predstavnici iste vrste, koji `ive u razli~itim temperaturnim zonama, imaju razli~ite dimenzije tela: u hladnijim krajevima `ive krupnije jedinke.
Ovo pravilo se obja{wava ~iwenicom da je za regulisawe telesne temperature veoma va`an odnos povr{ine tela i wegove mase (zapremine). Po{to od mase tela zavisi produkcija toplote, a od povr{ine weno odavawe, krupnije `ivotiwe lak{e odr`avaju balans izme|u produkovane i odate toplote, budu}i da je kod wih odnos povr{ine tela i zapremine pomeren u korist zapremine. Drugim re~ima, velika masa tela produkuje vi{e toplote, koja se mawe odaje u spoqa{wu sredinu s obzirom na to da je povr{ina tela u relativnim odnosima smawena.
Ovo pravilo va`i samo za toplokrvne `ivotiwe. Kod hladnokrvnih `ivotiwa situacija je gotovo suprotna. Najkrupniji reptili i vodozemci nalaze se upravo u najtoplijim krajevima. Na primer, obi~na zelena `aba znatno je krupnija u Tunisu nego u Nema~koj, a gu{ter zelemba} je u ju`noj Nema~koj duga~ak 35–40 cm , dok su najve}i primerci u Dalmaciji dugi i do 60 cm
Nasuprot wima, najsevernije vrste (2) koje `ive najbli`e ekvatoru visoki su oko 40–45 cm i te{ki izme|u 4,5 i 5 kg 2 1
Bergmanovo pravilo – prisutno je i kod razli~itih vrsta koje pripadaju istom rodu ili familiji. Na primer, vrste pingvina koje `ive najbli`e ju`nom polu (1) visoki su izme|u 100 i 120 cm i te{ki su do 34 kg
Alenovo pravilo tako|e se odnosi na prilago|enost toplokrvnih `ivotiwa uslovima temperature stani{ta. I ono se odnosi na oblik tela. Naime, ovo pravilo pokazuje da naro~ito oblik i veli~ina istaknutih telesnih delova (u{i, vrat, rep, ekstremiteti) u znatnoj meri uti~u na stepen prilago|enosti `ivotiwa okolnoj temperaturi. Istaknuti delovi tela intenzivnije odaju toplotu, pa se zato zapa`a da u hladnijim predelima `ivotiwe imaju mawe u{i, a kra}i rep, ekstremitete i vrat. Prema Alenovom pravilu, {to se vrsta nalazi u hladnijim predelima, istaknuti delovi tela wenih jedinki su sve kra}i, tako da je wihovo ~itavo telo kompaktnije. U su{tini ovo pravilo u direknoj je vezi sa Bergmanovim pravilom zbog toga {to se smawewem dimenzija istaknutih delova tela istovremeno smawuje i povr{ina tela preko koje bi se odavala telesna toplota.
Alenovo pravilo dokazano je i u eksperimentalnim uslovima – gajewem mi{eva na razli~itim temperaturama. Jedinke gajene na temperaturama izme|u 1,5 i 20° C imale su zdepastije telo i kra}i rep od jedinki gajenih na temperaturama izme|u 31 i 35° C
U toku dugog perioda evolucije, koju mo`emo shvatiti i kao neprekidan proces prilago|avawa novim uslovima spoqa{we sredine, ~esto se de{avalo da veoma srodni organizmi do|u do razli~itih adaptivnih re{ewa, tako da danas, iako su geneti~ki vrlo bliski, morfolo{ki izgledaju veoma razli~ito. Taj proces morfolo{kog odvajawa srodnih organizama naziva se ekolo{ka divergencija
U isto vreme odvijao se i potpuno suprotan proces tokom kojeg su geneti~ki veoma udaqene vrste u sli~nim ekolo{kim uslovima do{le do gotovo identi~nih adaptivnih re{ewa, tako da danas izgledaju skoro identi~no. Taj proces morfolo{kog pribli`avawa nesrodnih organizama naziva se ekolo{ka konvergencija
Uprirodi jedinke jedne biolo{ke vrste nikada ne `ive izolovano od ostalih jedinki koje pripadaju istoj vrsti. Istina, u prirodi postoji mawi broj vrsta ~ije jedinke najve}i deo svog `ivota provode usamqeno, tako da se veoma retko sre}u s drugim jedinkama svoje vrste. Me|utim, i te najusamqenije jedinke bar jednom u svom `ivotu moraju da se sretnu i da se udru`e s drugim jedinkama svoje vrste. U wihovom slu~aju jedinka s kojom imaju potrebu da se sretnu jeste jedinka suprotnog pola, a razlog susreta je, naravno, uro|eni nagon za razmno`avawem i produ`etkom sopstvene vrste.
Veliki period svoga `ivota jelen provodi kao usamqenik. Kada do|e vreme parewa jeleni se pridru`uju ko{utama
Skup jedinki jedne vrste koje u isto vreme `ive na istom stani{tu naziva se populacija Jedinke unutar jedne populacije stupaju u odnose razmno`avawa, ~ime se obezbe|uje produ`etak vrste. Zbog toga populacija predstavqa stvarni oblik postojawa biolo{kih vrsta
Populacija smr~a u {umi
Populacija pelikana na jezeru
Ekolo{ki faktori spoqa{we sredine, deluju}i na svaku pojedina~nu jedinku u stani{tu, istovremeno deluju i na ~itavu populaciju. Adaptivne promene koje nastaju kao rezultat prilago|avawa uslovima spoqa{we sredine javqaju se kod ve}eg broja jedinki. Ukoliko su adap-
tivna re{ewa dobra, u procesu razmno`avawa ona }e se brzo ra{iriti na sve jedinke jedne populacije. Dakle, adaptivne promene i evolucija vrste odvijaju se na nivou populacije, a ne na nivou jedinke ili vrste. Zbog toga populacija predstavqa centralnu evolutivnu jedinicu svih biolo{kih sistema.
Kao {to jedinke jedne vrste u prirodi nikada ne `ive usamqeno, tako ni populacija jedne vrste nikada ne `ivi izolovano od populacija drugih vrsta. Da bi mogle da opstanu tokom du`eg vremenskog perioda, u istom stani{tu moraju zajedno da `ive makar po jedna populacija jedne vrste biqaka (proizvo|a~i), jedna populacija jedne vrste `ivotiwa (potro{a~i) i jedna populacija jedne vrste gqiva (razlaga~i). Naravno, u prirodi je sve mnogo slo`enije, pa na jednom istom stani{tu uvek zajedno, u ekolo{kom skladu, `ivi veliki broj populacija razli~itih vrsta biqaka, `ivotiwa, gqiva i mikroorganizama. Na taj na~in populacije razli~itih vrsta izgra|uju `ivotnu zajednicu, odnosno izgra|uju `ivu komponentu ekosistema.
S obzirom na to da se na nivou populacije ostvaruje odr`avawe biolo{kih vrsta u vremenu, kao i da populacije predstavqaju osnovnu strukturnu komponentu biocenoze i ekosistema, jasno je da one predstavqaju veoma zna~ajan objekat istra`ivawa u biologiji. Nau~na disciplina koja se bavi prou~avawem populacija naziva se populaciona biologija
Osnovne odlike populacije kao veoma dinami~nog biolo{kog sistema su: brojnost igustina, prostorni raspored, natalitet imortalitet, emigracija i imigracija, uzrasna i polna struktura i rastewe
Brojnost populacije predstavqa jednu od najzna~ajnijih osobina svake populacije. Ona ozna~ava ukupan broj jedinki koje u odre|enom trenutku `ive u jednoj populaciji. Pored brojnosti, veoma zna~ajnu osobinu populacije ~ini i wena gustina. Gustina populacije predstavqa broj jedinki na jedinici povr{ine ili zapre mine stani{ta. Dakle, brojnost i gustina odre|uju veli~inu populacije
Populacija irvasa je veoma brojna i veoma gusta. Populacija polarnih medveda je malobrajna i veoma retka.
Prostorni raspored populacije pokazuje na koji su na~in jedinke raspore|ene po stani{tu koje naseqavaju. Raspored zavisi od klimatskih i drugih abioti~kih i bioti~kih uslova u stani{tu, kao i od samih biolo{kih karakteristika vrste. U osnovi je mogu}e ra-
ravnomeran raspored neravnomeran raspored grupni raspored
Prostorni raspored populacije
zlikovati neravnomeran, ravnomeran i grupni raspored jedinki u prostoru. Neravnomeran ili slu~ajan raspored javqa se kada je sredina ujedna~eno povoqna za zadovoqavawe `ivotnih potreba svih jedinki. U sredini koja je ujedna~eno nepovoqna postoji ravnomeran raspored. Na kraju, u sredini koja je neujedna~eno povoqna postoje lokalna mesta koja pru`aju boqe uslove za `ivot, pa se javqa grupni raspored populacije. Takav raspored karakteristi~an je za qudske populacije.
Tokom vremena u populaciji stalno dolazi do produkcije novih jedinki razmno`avawem (ra|awe, piqewe, isklijavawe, deoba i dr.). Stalno ra|awe novih jedinki u populaciji naziva se natalitet. Natalitet je faktor pove}awa brojnosti populacije. Uporedo sa stalnim ra|awem, u populaciji deo jedinki stalno umire. Jedinke u populaciji mogu umreti zbog starosti, zbog bolesti ili, jednostavno, mogu ih pojesti drugi ~lanovi `ivotne zajednice. Proces umirawa jedinki u populaciji naziva se mortalitet. Mortalitet je faktor smawewa brojnosti populacije. U svakoj prirodnoj populaciji odnos izme|u ra|awa i umirawa je izbalansiran. Zbog toga brojnost jedinki u populaciji tokom dugog vremenskog perioda ostaje, mawe ili vi{e, ujedna~ena.
Osim ra|awem i umirawem, brojnost prirodnih populacija mo`e se mewati i ukoliko odre|eni broj jedinki napusti, tj. ukoliko se iseli iz svoje populacije. U prirodi je, tako|e, ~esta pojava da izvestan broj jedinki jednostavno do|e, odnosno useli se u novu populaciju. Raseqavawe jedinki iz jedne populacije naziva se emigracija, a doseqavawe – imigracija
Odnos izme|u raseqenih i doseqenih jedinki u populaciji tako|e je izbalansiran.
Uzrasna struktura populacije predstavqa broj~ani odnos izme|u jedinki koje se nalaze na razli~itim stupwevima individualnog razvi}a. Od uzrasne strukture zavisi kako }e se brojnost populacije mewati tokom vremena. Obi~no populacija raste kada u wenoj uzrasnoj strukturi dominiraju mlade jedinke, a stagnira ili opada kada u woj dominiraju stare jedinke. Rastewe populacije podrazumeva promenu brojnosti, odnosno veli~ine populacije u odre|enom vremenskom periodu. Rastewe mo`e biti pozitivno, kada brojnost raste, a mo`e biti i negativno, kada brojnost populacije opada. Svaka populacija se odlikuje odre|enim potencijalom razmno`avawa. Taj potencijal predstavqa maksimalan broj novonastalih jedinki koje jedna populacija mo`e da produkuje u optimalnim ekolo{kim uslovima. U kojoj meri }e se potencijal razmno`avawa ostvariti, zavisi od otpora sredine, koji predstavqa kompleks dejstava svih ekolo{kih faktora u stani{tu. Zbog otpora sredine potencijal razmno`avawa populacije nikada se ne ostvaruje do maksimuma. Drugim re~ima, otpor sredine reguli{e brojnost, odnosno rastewe populacije.
Prema potencijalu svog razmno`avawa, jedan par doma}ih vrabaca, na primer, mogao bi, ukqu~uju}i produkciju svih wegovih potomaka, teorijski da proizvede ukupno 275 716 983 699 jedinki. Na osnovu takvog biolo{kog potencijala prora~unato je da bi na 100 jutara (575 400 m2) prostora moglo da `ivi ~ak 575 vrabaca. Me|utim, u prirodi je zbog dejstva otpora sredine situcija sasvim druga~ija, pa se na povr{ini od 100 jutara nikada ne javqa vi{e od 9 do 13 parova vrabaca.
U prirodnim ekosistemima neke vrste imaju veoma stabilnu brojnost populacija. Nasuprot wima, brojnost drugih vrsta ponekad veoma brzo raste, dok ponekad dolazi i do „populacionog kraha”. Iako dinamika rastewa populacija zavisi od mnogih faktora, ipak je mogu}e uo~iti odre|ene zakonitosti koje obja{wavaju zbog ~ega populacije ne mogu beskona~no da rastu.
Zamislimo situaciju da mali broj ze~eva pustimo u veliku, bujnu livadu u kojoj du`e vreme nije bilo ze~eva. U po~etku oni }e se upoznavati sa novom teritorijom i ne}e dolaziti do bit-
nijeg pove}awa wihove brojnosti. Posle faze upoznavawa s novom teritorijom nastupa faza intenzivnog razmno`avawa i brzog pove}awa brojnosti populacije. U toj fazi veliki broj ze~eva po~iwe da vr{i veliki „pritisak“ na biqke kojima se hrani. Ze~evi }e pojesti vi{e nego {to biqke mogu da proizvedu, pa dolazi do ograni~ewa u koli~ini dostupne hrane, koja postaje limitiraju}i faktor. U tom trenutku rastewe populacije se zaustavqa. Ako bi se promena brojnosti populacije tokom ovog eksperimenta prikazala grafi~ki, dobila bi se karakteristi~na sigmoidna kriva
Dinamika rastewa popuplacije mo`e se analizirati i u mikrobiolo{koj laboratoriji. Ako na hranqivu podlogu, u kontrolisanim ekolo{kim uslovima, stavimo nekoliko bakterija, mo}i }emo da pratimo rastewe bakterijske populacije. U po~etku }e se bakterije prilago|avati novoj sredini (lag faza), a zatim dolazi do eksponencijalnog rastewa brojnosti populacije (log faza). Posle eksponencijalnog, nastupa period ravnomernog rastewa (linearna faza), da bi na kraju, zbog smawewa koli~ine hranqivih materija iz podloge i nagomilavawa {tetnih produkata metabolizma, do{lo do usporavawa i zaustavqawa rasta populacije (stacionarna faza). Ukoliko se iz podloge potro{i sva hranqiva materija, ili se produkti metabolizma nagomilaju u tolikoj meri da postanu toksi~ni, nastaje faza u kojoj brojnost populacije po~iwe da opada. U krajwem slu~aju, populacija koja je nekada bila veoma brojna mo`e do`iveti svoj krah i potpuno nestati.
Iako eksponencijalno rastewe i veliko pove}awe brojnosti populacije naizgled predstavqaju dobrobit za samu vrstu, takav trend rasta jednostavno nije odr`iv jer kao posledicu uvek ima brzu potro{wu neophodnih resursa i nagomilavawe nepotrebnih i {tetnih produkata sopstvene `ivotne aktivnosti. To na kraju uvek dovodi do opadawa brojnosti ili ~ak do potpunog kraha populacije. Zbog toga u prirodi populacije imaju tendenciju da svoje rastewe zaustave na odre|enom odr`ivom nivou, koji je uskla|en sa tzv. kapacitetom sredine Ukoliko brojnost populacije prevazi|e kapacitet sredine, zbog redukcije neophodnih resursa dolazi do brzog smawewa brojnosti. Nasuprot tome, ukoliko brojnost populacije iz nekog razloga opadne, dolazi do pove}awa koli~ine hrane koja se mawe tro{i, pa uslovi za efikasnije razmno`avawe postaju povoqniji, {to ponovo dovodi do pove}awa brojnosti populacije. Drugim re~ima, populacija ima tendenciju da svoju brojnost prirodno samoreguli{e.
U toku rasta populacije mogu}e je razlikovati nekoliko faza. U po~etku brojnost se pove}ava postepeno (1), nakon ~ega dolazi do eksponencijalnog rasta (2), pa linearnog (3) rasta populacije. Na kraju populacija dolazi u stacionarnu fazu (4) kada se brojnost popuplacije bitno ne mewa.
@ivotna zajednica predstavqa skup organizama razli~itih vrstakoje `ive zajedno na istom stani{tu . Prema na~inu `ivota i ishrane, sve vrste u zajednici grupisane su u proizvo|a~e, potro{a~e i razlaga~e. Oni ne mogu `iveti jedni bez drugih. Kao {to `ivotiwe ne mogu da `ive bez biqaka, tako ni biqke ne mogu `iveti bez `ivotiwa, a naro~ito ne mogu `iveti bez gqiva i bakterija. Naravno, ni gqive i bakterije ne mogu da `ive bez biqaka i `ivotiwa. Prema tome, da bi biocenoza mogla da opstane tokom du`eg vremenskog perioda, wu moraju da sa~iwavaju razli~ite vrste proizvo|a~a, potro{a~a i razlaga~a.
Organizmi razli~itih vrsta koji grade `ivotnu zajednicu (biocenozu) `ive u neraskidivom jedinstvu sa svojim stani{tem (biotopom). To neraskidivo jedinstvo `ive i ne`ive prirode, u stvari, predstavqa ekosistem u kome se ostvaruju osnovni `ivotni procesi i aktivnosti `ivih bi}a. Dakle, biocenoza ili `ivotna zajednica u prirodi ne mo`e postojati izvan svog stani{ta. Ona predstavqa samo `ivu komponentu svakog ekosistema.
Sve jedinke jedne populacije u `ivotnoj zajednici zauzimaju mawe, ili vi{e, isti deo prostora, koriste uglavnom iste fizi~ke i hemijske resurse stani{ta i hrane se, uglavnom, istom vrstom hrane. U odnosima ishrane sve jedinke jedne populacije, tako|e zauzimaju mawe ili vi{e isti polo`aj, {to zna~i da imaju uglavnom istu funkciju u `ivotnoj zajednici. Deo prostora, deo resursa i funkcije koje jedinke svake populacije ostvaruju u `ivotnoj zajednici nazivaju se ekolo{ka ni{a. Svaka vrsta u zajednici zauzima svoj deo prostora i resursa, dakle ima svoju ekolo{ku ni{u. Razli~ite vrste sa istim ili veoma sli~nim ekolo{kim ni{ama ne mogu `iveti
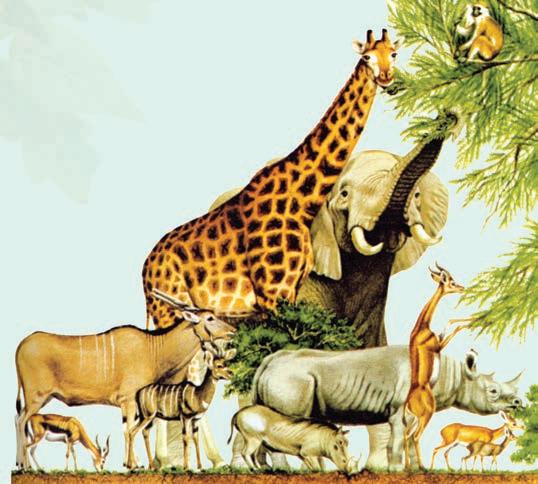
Ekolo{ka ni{a – razli~iti biqojedi u savani hrane se biqkama iz razli~tih delova zajednice
zajedno u istom stani{tu. Osnovno ekolo{ko pravilo koje omogu}uje da veliki broj vrsta `ivi u istom ekosistemu jeste da razli~ite vrste imaju razli~ite potrebe i prohteve, odnosno razli~ite ekolo{ke ni{e. Ekolo{ku ni{u je najlak{e shvatiti kada se posmatraju odnosi ishrane u stani{tu. Na primer, u listopadnim {umama na{e zemqe `ivi veliki broj razli~itih `ivotiwa. Na prvi pogled se mo`e u~initi da sve one koriste isti prostor i iste resurse te {ume. Me|utim, kada se malo boqe pogleda, vidi se da svaka `ivotiwa naseqava odre|eni deo {umskog ekosistema i prete`no koristi specifi~nu hranu koju ne koriste ostale `ivotiwe. Ako uporedimo deo {ume u kojoj `ive i hranu kojom se hrane veverica, vuk i glista, lako }emo uo~iti razlike u wihovim ekolo{kim ni{ama. Me|utim, i kada posmatramo jednu srodnu grupu `ivotiwa koje `ive u istom delu {ume, uo~i}emo da se i one razlikuju po svojim ekolo{kim ni{ama. Na primer, u kro{wama drve}a `ivi veliki broj razli~itih insekata. Jedni se hrane listovima, drugi pupoqcima, tre}i polenom, ~etvrti odrvenelim delovima stabala, a peti su mesojedi i hrane se drugim insektima. U zavisnosti od toga koliko }e koja grupa insekata pojesti svoje hrane zavisi u kakvom }e stawu biti drve}e. Ako ima previ{e onih koji jedu listove, drve}e }e slabije vr{iti fotosintezu, pa }e procesi proizvodwe hranqivih materija u {umi biti poreme}eni. Ukoliko ima previ{e onih koji se hrane odrvenelim delovima, drve}e oboleva, pa se ti procesi proizvodwe u {umi tako|e mogu redukovati. Dakle, osim {to zauzimaju odre|eni prostor i koriste odre|enu hranu, svaka od pomenutih grupa insekata svojim na~inom `ivota uti~e i na ukupno funkcionisawe ekosistema. To zna~i da ekolo{ka ni{a, pored prostora i resursa, podrazumeva i funkcije koje ostvaruju sve pojedina~ne vrste u zajednici.
@ivotna zajednica, kao skup populacija razli~itih vrsta koje zauzimaju razli~ite ekolo{ke ni{e i koje ostvaruju razli~ite funkcije u ekosistemu, predstavqa veoma slo`en i visokoorganizovan sistem. Prirodne biocenoze nisu slu~ajni skupovi populacija razli~itih vrsta. To su zajednice `ivih bi}a nastale tokom dugog istorijskog procesa prilago|avawa razli~itih vrsta zajedni~kim uslovima `ivota u stani{tu.
Skup svih vrsta prilago|enih konkretnim uslovima stani{ta predstavqa kvalitativan sastav biocenoze. Uslovi `ivota u istoj biocenozi u razli~itoj meri odgovaraju razli~itim vrstama. Neke vrste u konkretnoj biocenozi nalaze optimalne uslove za svoj `ivot, dok druge jedva uspevaju. Vrste koje u biocenozi imaju najveću brojnost i biomasu, nazivaju se dominantne vrste.U {umskim zajednicama dominantno je drve}e, u livadskim trave, a u pustiwskim – kaktusi. Me|utim, zna~ajno je ista}i da dominantne vrste u biocenozi nisu i najzna~ajnije! One su samo najbrojnije i najmasovnije! Da bi biocenoza mogla da traje tokom vremena, u woj, zajedno sa dominantnim vrstama, uvek moraju da `ive i one druge, ~esto nevidqive, ali tako|e zna~ajne vrste `ivih bi}a.
Cvetawe prole}nica u {umskom ekosistemu traje samo nekoliko nedeqa pre listawa drve}a.
Svaka biocenoza ima svoju prostornu i svoju vremensku organizaciju, koje omogu}uju da u istim uslovima spoqa{we sredine `ivi maksimalno veliki broj razli~itih vrsta `ivih bi}a.
Pod prostornom organizacijom `ivotne zajednice podrazumeva se, pre svega, wena struktura. Struktura biocenoze predstavqa raspored ~lanova zajednice u prostoru. Ona zavisi od sastava razli~itih vrsta biqaka, `ivotiwa, gqiva i mikroorganizama, zatim od wihove brojnosti i gustine, kao i od wihove veli~ine. Na primer, struktura jedne {umske i jedne livadske zajednice veoma se razlikuju zbog toga {to u {umi najve}u brojnost i gustinu ima visoko drve}e, a na livadi – niske zeqaste biqke.
Da bi {to efikasnije iskoristile `ivotne uslove u stani{tu, razli~ite vrste biqaka, `ivotiwa, gqiva i mikroorganizama naseqavaju razli~ite delove prostora u obliku jasno prepoznatqivih slojeva ili spratova. Takva prostorna organizacija biocenoze naziva se spratovnost. Ona postoji i u suvozemnim i u vodenim biocenozama.
U suvozemnim zajednicama veoma je izra`ena vertikalna spratovnost, i to kako iznad same povr{ine zemqi{ta (nadzemna spratovnost), tako i u dubqim delovima podloge (podzemna spratovnost). Najslo`eniju strukturu imaju stare o~uvane {umske zajednice, u kojima je ponekad mogu}e razlikovati i vi{e od deset spratova.
Kao {to razli~iti ~lanovi `ivotne zajednice ostvaruju svoje `ivotne aktivnosti u razli~itim delovima biocenoze, tako i razli~iti ~lanovi biocenoze mogu svoje `ivotne aktivnosti ostvarivati u razli~ito vreme. Ta osobina da se razli~ite aktivnosti u biocenozi ostvaruju u razli~ito vreme predstavqa vremensku organizaciju `ivotne zajednice Pod vremenskom organizacijom `ivotne zajednice podrazumevaju se dnevne, mese~ne i sezonske promene koje ne dovode do su{tinskih izmena sastava i osobina `ivotne zajednice. Dnevne promene nastaju usled dnevno-no}nog ritma aktivnosti nekih ~lanova biocenoze, mese~ne promene su vezane za mese~ne ritmove aktivnosti, dok se sezonske promene de{avaju zbog pravilnih smena klimatskih prilika u toku jedne godine. Izgled biocenoze u razli~itim godi{wim dobima mo`e da bude veoma razli~it i u ekologiji se naziva aspekt , a same sezonske promene zajednice – aspektivnost
Spratovnost – visoko i nisko drve}e, `bunovi i zeqaste biqke izgra|uju osnovne spratove u listopadnim {umama.
Aspektivnost – u vreme punog cvetawa sive granitne stene poprimaju najrazli~itije boje.
Svi organizmi u ekosistemu uti~u jedni na druge. Odnosi me|u wima su nesumwivo najzna~ajniji odnosi koji vladaju u prirodnim ekosistemima. Ti odnosi su tokom dugog vremena me|usobnog prilago|avawa doveli do stabilizacije brojnosti populacija koje sa~iwavaju biocenozu, kao i do formirawa stabilnog ekosistema. Upravo se u wima nalazi su{tina kontrole i samoregulacije koja ekosistem ~ini funkcionalnim i stabilnim sistemom.
Me|usobni odnosi organizama u biocenozi, ili bioti~ki faktori, veoma su raznovrsni i slo`eni. Po svojoj prirodi i na~inu delovawa mnogo su slo`eniji od abioti~kih faktora. Mogu da budu neposredni – kada organizmi direktno uti~u jedan na drugog, ili posredni –kada jedan organizam deluje na drugi tako {to svojom aktivno{}u mewa uslove sredine. Pored toga, me|usobni odnosi organizama u biocenozi mogu da budu povremeni (fakultativni) ili stalni (obligatni). I na kraju, organizmi u biocenozi mogu stupati u odnose s drugim organizmima koji pripadaju istoj vrsti (intraspecijski odnosi), kao i sa drugim organizmima koji pripadaju razli~itim vrstama (interspecijski odnosi).
Ve} je re~eno da odnosi ishrane izme|u ~lanova biocenoze predstavqaju jedan od osnovnih i najva`nijih tipova odnosa koji vladaju u biocenozi jer se upravo kroz te odnose ostvaruje kru`ewe materije u ekosistemu. Odnosi ishrane mogu da budu direktni i indirektni. Organizmi u biocenozi stupaju u direktne odnose ishrane na nekoliko razli~itih na~ina. U zavisnosti od toga ko koga i na koji na~in jede, razlikuju se: herbivorija, predatorstvo, parazitizam i poluparazitizam
Herbivorija je odnos ishrane u kojem se biqojedi hrane biqkama. U tom odnosu biqka, kao hrana, trpi odre|enu {tetu, dok biqojed ima neposrednu korist. Budu}i da predstavqaju osnovnu hranu, biqke su razvile niz adaptacija koje su im omogu}ile da, bez obzira na to {to ih biqojedi neprestano jedu, one uvek odr`e svoju brojnost na neophodnom nivou. Jedan deo adaptacija biqaka i{ao je u pravcu odbijawa `ivotiwa da koriste biqke kao hranu. U tom smislu pojavile su se mnoge specijalne morfolo{ko-anatomske (bodqe, trnovi, ko`asti tvrdi listovi i sl.) i hemijske (otrovi) prilago|enosti, koje su odbijale biqojede od konzumirawa ovako specijalizovanih biqaka. Naravno, kao {to su biqke razvijale mehanizme odbrane od biqojeda, tako su se i biqojedi specijalizovali i nalazili na~ine da prevazi|u mehani~ke ili hemijske prepreke i do|u do hranqivih materija koje su biqke proizvele. Drugi deo adaptacija biqaka i{ao je u pravcu razvijawa mehanizama koji su, u smislu rasta biqnog tela, efikasno nadokna|ivali ono {to su biqojedi pojeli. Neke biqke, kao {to su trave u nepreglednim savanama, ove mehanizme su usavr{ile do te mere da je intenzitet wihovog rastewa neposredno uslovqen intenzitetom ispa{e. One boqe i br`e rastu ukoliko ih biqojedu vi{e jedu!
Predatorstvo je odnos ishrane u kome jedna `ivotiwa (lovac – grabqivac) aktivno lovi drugu `ivotiwu (plen) kojom se hrani. U tom odnosu lovac ima neposrednu korist, dok plen ima apsolutnu {tetu, koja dovodi do trenutne smrti. Kao i u odnosu biqka – biqojed, tako i u odnosu plen–lovac postoje slo`eni mehanizmi koji tokom dugog vremenskog perioda odr`avaju brojnost populacija plena i lovaca na ujedna~enom nivou. U prirodi ne postoje lovci koji bi na svom stani{tu izlovili sav plen jer bi posle toga bili osu|eni na glad i sigurno izumirawe. Idealni lovci u prirodi love samo onoliko koliko im je potrebno za
opstanak i razmno`avawe. Tokom dugog vremenskog perioda brojnost populacija lovaca i plena mewa se uz pravilne oscilacije. Na primer, broj ze~eva osciluje dosti`u}i maksimum svakih nekoliko godina, posle ~ega opada. Kako se broj ze~eva pove}ava, sa malim vremenskim zaka{wewem pove}ava se i broj lisica. Ve}i broj lisica ulovi vi{e ze~eva, pa se broj ze~eva smawuje. Prema tome, pove}awem brojnosti lovaca reguli{e se broj jedinki plena.
Parazitizam je odnos ishrane u kojem jedan organizam (parazit) `ivi na ra~un drugog organizma (doma}ina). Parazitski organizmi `ive na ili u doma}inu ~ijim telom se hrane. U tom odnosu parazit ima neposrednu korist, dok doma}in ima {tetu koja, po pra vi lu, dovodi do odlo`ene smrti.
Poluparazitizam je odnos ishrane u kome poluparazit deo svojih potreba ostvaruje na ra~un doma}ina, a deo ostvaruje sâm.
Poluparazitski odnosi ne dovode do smrti doma}ina, pa {teta za doma}ina nije tako drasti~na kao u slu~aju parazitizma.
Poluparazitizam. – Veoma ~esto neke vrste biqaka imaju sposobnost da samostalno vr{e fotositezu, ali ne mogu samostalno da uzimaju iz zemqi{ta vodu sa neophodnim mineralnim materijama. Zbog toga su (kao ova imela na slici) svojim korenovima povezane sa drugim biqkama od kojih dobijaju neophodne materije.
Pored direktnih odnosa ishrane, u svakoj biocenozi uvek su prisutni i indirektniodnosi ishrane. Veoma često različite vrste koriste istu ili sličnu hranu. One zbog toga stupaju u kompetitivne odnose. Vrsta koja, na primer, uspešnije lovi, može uzrokovati redukciju ili totalno iskqučivawe iz biocenoze drugih vrsta koje se hrane istom ili sličnom hranom. U kompeticiji za hranu mogu stupiti kako individue koje pripadaju različitm vrstama, tako i individue koje pripadaju istoj vrsti.
U indirektne odnose, pored konkurencije za hranu, ukqu~uju se i konkurentski odnosi za sve ostale resurse stani{ta koji su, tako|e, ograni~eni, pa se organizmi u biocenozi moraju me|usobno boriti da bi do wih do{li. Biqke se bore za svetlost, prostor i mineralne materije u zemqi{tu. @ivotiwe se bore za hranu, skloni{te ili `enke. Ovi veoma slo`eni i zna~ajni odnosi, koji u najve}oj meri dovode do stabilizacije brojnosti populacija razli~itih vrsta u biocenozi, u naj{irem smislu se ozna~avaju kao kompeticija.
U svakom ekosistemu izme|u jedinki istih i razli~itih vrsta uspostavqene su najrazli~itije vrste odnosa
Pored odnosa ishrane, u svakoj biocenozi postoji jo{ mnogo razli~itih vrsta stalnih ili povremenih odnosa vezanih za probleme stanovawa, razmno`avawa, rasejavawa ili raseqavawa ~lanova `ivotne zajednice. Ti odnosi se, u naj{irem smislu, ozna~avaju kao simbioza. S obzirom na to da u ovom tipu odnosa razli~iti organizmi mogu imati razli~itu korist ili {tetu, danas je u biocenozama lako uo~iti nekoliko razli~itih vrsta simbiotskih odnosa. U narednoj tabeli prikazano je pet razli~itih vrsta simbiotskih odnosa.
Vrsta simbioze
Organizam A Organizam B Tip dejstva
Mutualizam + +
Komensalizam + 0
Amensalizam 0 –
Neutralizam 0 0
Protokooperacija „+“ „+“
Oba organizma u simbiozi imaju korist — obostrana korist.
Samo jedan organizam u simbiozi ima korist dok drugi ne tripi nikakvu štetu — jednostrana korist
Samo jedan organizam u simbiozi ima korist dok drugi tripi odre|enu štetu — jednostrana korist
Odnos bez direktne koristi za oba člana simbioze
Organizmi stupaju u povremenu simbiozu, u kojoj oba imaju korist — fakultativni mutualizam.
+ ukazuje na pozitivan efekat odnosa, – ukazuje na negativan efekat odnosa, 0 ukazuje da nema značajnih interakcija
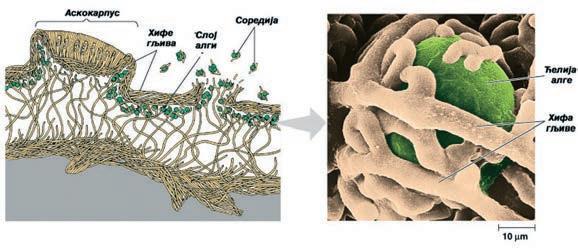
Simbioza – Najfascinantniji primer simbioze predstavqaju li{ajevi. To su organizmi u kojima razli~ite vrste algi i gqiva `ive u takvom jedinstvu da se wihova zajednica prepoznaje kao poseban organizam.
Izlu~eno od
Vi{e biqke
Marazmini
Mikroorganizmi
Deluje na
Vi{e biqke
Mikroorganizmi Kolini
Antibiotici
Alelopatija – razli~iti organizmi produkuju razli~ita hemijska jediwewa kojima se {tite od drugih organizama iz biocenoze.
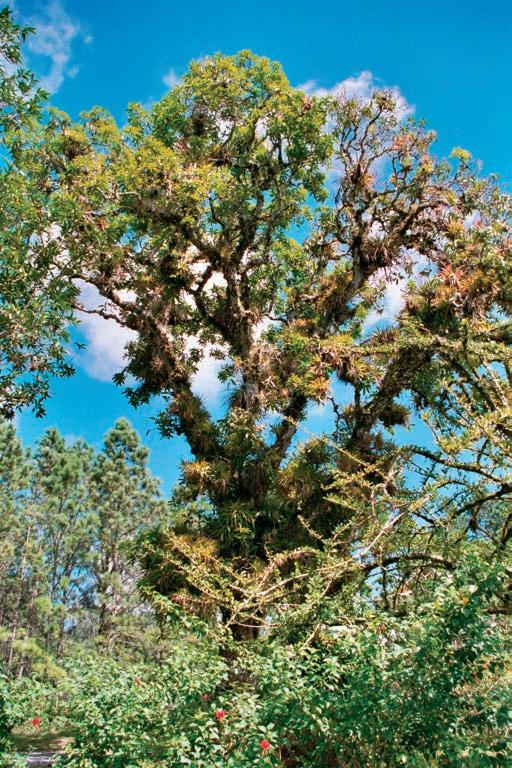
Epifitizam – Da bi re{ili problem nedostatka svetlosti u najni`im delovima tropskih {uma, mnoge zeqaste biqke ne `ive na zemqi ve} se ukorewuju na granama i stablima visokog drve}a.
Karnivorne biqke umesto iz podloge neophodna jediwewa za proces fotosinteze dobijaju razlagawem tela ulovqenih `ivotiwa
Mutualizam – U procesu opra{ivawa i biqka i insekt imaju direktnu korist.
Svako `ivo telo ima dve velike potrebe. Jedna od wih je energija. Za odvijawe svih hemijskih procesa u organizmu, odr`avawe unutra{we strukture }elija i organa, kretawe, razmno`avawe – za sve to je potrebna odre|ena energija kao pokreta~ka snaga. Druga velika potreba su hranqive materije. One predstavqaju osnovni materijal i gradivne blokove za obnavqawe, odr`avawe i rast tela. Dakle, da bi moglo da `ivi, svako `ivo bi}e mora redovno da se hrani, a hrana, kakvog god da je oblika, mora sadr`ati energiju i hranqive materije. S obzirom na to da `iva bi}a hranu nalaze u svojoj `ivotnoj sredini, odnosno u ekosistemu u kojem `ive, odnosi ishrane ili trofi~ki odnosi spadaju me|u najva`nije odnose koji vladaju u prirodi.
Bez obzira na izgled, miris i ukus sve {to ima organsko poreklo za nekoga predstavqa osnovnu
Različite vrste organizama se u ekosistemu hrane na veoma različite načine. Zelene biqke se hrane na račun hrane koju su same proizvele u procesu fotosinteze. Za potrebe sopstvenog rasta, razmnožavawa i drugih životnih aktivnosti, biqke troše samo jedan deo te proizvedene hrane, dok drugi deo akumuliraju u svojim telima. Zbog toga što samostalno proizvode hranu, zelene biqke predstavqaju proizvođače hrane u ekosistemu.
Životiwe nisu sposobne da samostalno proizvedu hranu za svoje potrebe. Zbog toga one moraju aktivno da traže hranu. Tokom duge evolucije života različite vrste životiwa prilagodile su se različitim vrstama ishrane. Jedna velika grupa životiwa iskqučivo se hrani biqnom hranom – to su biqojedi. Druga velika grupa specijalizovana je za ishranu drugim životiwama, odnosno mesom – to su mesojedi. Treća, znatno mawa grupa, uspela je da se prilagodi ishrani hranom i biqnog i životiwskog porekla – to su svaštojedi. Na kraju se nalaze mnoge sitne životiwe, po pravilu, insketi i drugi beskičmewaci, koji se hrane uginulim i poluraspadnutim delovima biqaka i životiwa – to su detritojedi 2 Zbog toga što
Razli~ite `ivotiwe hrane se hranom razli~itog porekla.
troše hranu koju su drugi proizveli, biqojedi, mesojedi, svaštojedi i detritojedi predstavqaju potrošače hrane u ekosistemu.
Gqive su možda najinteresantnija grupa organizama, koja živi u svakom kopnenom ekosistemu. Wihovo glavno telo, kojim se gqive, u stvari, hrane, nalazi se ispod zemqe ili je smešteno u stablima biqaka. Ono je izgra|eno od izuzetno razgranate mreže micelijuma, koja upija hranqive materije i energiju iz živih ili uginulih i poluraspadnutih delova biqaka
Razli~ite vrste gqiva tako|e se hrane razli~itom hranom. Trud (1) je saprotrof jer se hrani uginulim delovima stabala. Parazitne gqive mogu se hraniti i biqkama (2), ali i `ivotiwama (3). 12 3
2 Detritojed (lat. detritus – proizvod raspadawa), onaj ko se hrani uginulim i raspadnutim delovima `ivih organizama.
Detritojedisurazli~itisitnistanovnici zemqi{takojisehraneraspadnutimdelovima biqakai`ivotiwa.
biqakaiživotiwakojesenalazeuzemqištu.Ukolikosehraneuginulimdelovimabiqakai životiwa,govorimoo saprotrofskimgqivama,aukolikosehraneživimdelovima,govorimoo parazitima ili poluparazitima.Tokomsvojeishranegqiverazgrađujuorganskumaterijuuneorgansku,paperdstavqajuglavnugrupu razlagača uekosistemu. Bakterije i drugimikroorganizmi u ekosistemu,po pravilu,hrane sena sličan načihkao i gqive. Dakle, i oni tokom svojeishrane razlažuorgansku materiju u neorgansku, pa u isto vremepripadaju i grupi razlagača Kao i gqive, i bakterije i drugimikroorganizmi mogudabudusaprotrofi ili paraziti. Sobziromnatodasemnogesaprotrofskegqiveibakterijehranedetritusom,i wihponekadukqučujuudetritojede. Ovde jasamovažnoimatinaumudadetritojede gqiveibakterije,zarazlikuod detritojedihživotiwa,tokomsvojeishrane organskumaterijurazgrađujuuneorgansku, pazbogtogaupravogqiveibakterijepripadajugrupipravihrazlagača.
Bezobziranatoštoseodnosiishraneusvakomekosistemuneprekidnoodvijaju, različitevrsteogranizamaudugomvremenskomperioduodržvajubrojnostisvojihpopulacijanamawe-višeujednačenomnivou.Nikadasenedešavadabiqojedipojedusvebiqke, nitidamesojedipojedusvebiqojede.Idealnilovciuprirodilovesamoonolikokolikoim jepotrebnozasopstveniopstanakizarazmnožavawe.Uprirodinepostojelovcikojibina svomestaništuulovilisavplenizprostograzlogaštobinakontogabiliosu|eninaglad isigurnoizumirawe.Zbogtogasuuprirodiodnosiishraneveomafino uravnoteženi
Usvakomprirodnomio~uvanomekosistemuodnosiishranesupreciznoure|eni.Proizvo|a~i,potro{a~i i razlaga~isuubiocenozi ~vrstopovezani.Od proizvo|a~apolazemnoge serijepotro{a~a.Teserijepredstavqaju lance ishrane (trofi~kelance), ukojimasvakukariku~ine pojedini~lanovi biocenoze.Sobziromnatoda biqnimaterijalnapo~etkulancaishranemo`e dabudepojedenuobliku `ivogiliuginulogdela biqke, u ekosistemima postojedvatipalanaca ishrane.Biqojedikoji jedu`ivedelovebiqakaformirajutzv. herbivornilanacishrane,dokbiqojedikojijedu uginuledelovebiqakaformirajutzv. detritivornilanacishrane
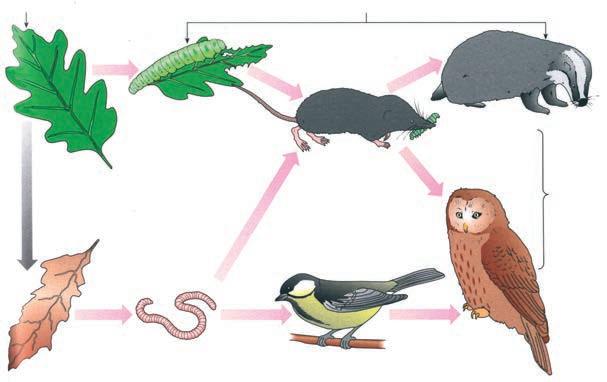
Herbivorni(1)idetritivornilanacishrane(2).
U prirodi lanci ishrane nikada nisu izolovani jedni od drugih. Herbivorni i detritivorni lanci su me|usobno povezani u veoma isprepletene mre`e ishrane. Jednom biqkom uvek se hrani ve}i broj razli~itih biqojeda, a jedan mesojed, po pravilu, na svom jelovniku ima ve}i broj `ivotiwa, koje se nalaze na razli~itim nivoima lanaca ishrane.
Polo`aj u lancu ishrane na kome se odre|eni organizam hrani naziva se trofi~ki nivo U tom smislu biqke kao primarni proizvo|a~i nalaze se na prvom trofi~kom nivou, biqojedi pripadaju drugom nivou, dok se razli~ite grupe mesojeda raspore|uju na vi{im trofi~kim nivoima.
potro{a~i tre}eg reda (jazavac)
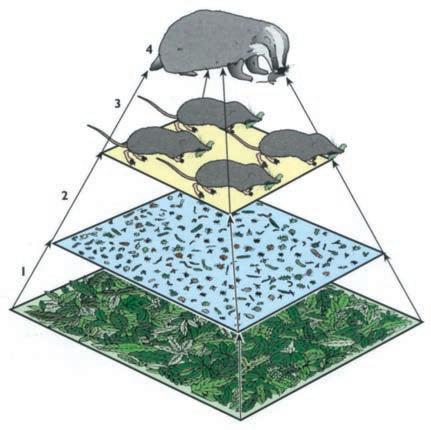
trofi~ki nivo
potro{a~i drugog reda (rov~ice)
potro{a~i prvog reda (insekti i gusenice)
tercijalni potro{a~i (lisice)
sekundarni potro{a~i (fazani)
primarni potro{a~i (skakavci)
proizvo|a~i (trava)
primarni proizvo|a~i (zelene biqke)
Trofi~ka piramida biomase
Brojnost biqaka i wihova ukupna masa su, po pravilu, najve}e u ekosistemu. Posle biqaka po masi dolaze biqojedi, a na kraju mesojedi. Kada se odnosi brojnosti i mase biqaka, biqojeda i mesojeda u ekosistemu prika`u grafi~ki, dobija se piramida koja se u ekologiji naziva trofi~ka piramida. U wenoj osnovi su zelene biqke, a na vrhu – specijalizovani mesojedi. Razlikuju se piramide brojnosti, piramide biomase i piramide energije. Trofi~ke piramide su od velikog zna~aja u analizi ekosistema. One se mogu koristiti u fundamentalnoj ekologiji za analizu sezonskih promena ili komparaciju razli~itih tipova ekosistema. Pored toga, one danas imaju i veliki zna~aj u aplikativnoj ekologiji jer se pomo}u wih mo`e analizirati i savremeni antropogeni uticaj na `ivotnu sredinu.
[umski ekosistem
tercijalni potro{a~i (jastreb)
sekundarni potro{a~i (insektizorne ptice)
primarni potro{a~i (gusenice)
proizvo|a~i (hrastovi)
Trofi~ka piramida brojnosti u livadskom i {umskom ekosistemu
Piramida brojnosti predstavqa dijagram u kome su prikazane brojnosti svih organizama koji pripadaju razli~itim trofi~kim nivoima. Te informacije se mogu relativno lako prikupiti bez uni{tavawa samih ~lanova biocenoze. S obzirom na to da u ovom slu~aju nisu
ukqu~ene informacije o dimenzijama samih organizama, piramida brojnosti ima ograni~en zna~aj u ukupnoj analizi ekosistema.
Piramida biomase predstavqa dijagram u kome su prikazani podaci o biomasi svih organizama koji pripadaju razli~itim trofi~kim nivoima. Prikupqawe informacija o biomasi je znatno komplikovanije i zahteva primenu posebnih metoda za izra~unavawe te`ne biqaka i `ivotiwa, koje moraju biti ubrane i izlovqene kako bi se procenila wihova biomasa na razli~itim trofi~kim nivoima. Rezultati ovih analiza, u kombinaciji sa podacioma o brojnosti, veoma dobro ukazuju na stawe u kome se ekosistemi nalaze. Stabilni ekosistemi, po pravilu, imaju izgled piramide sa {irokom osnovom, dok se u antropogeno naru{enim ekosistemima osnova piramide su`ava, a wen vrh se {iri, ~ime se nestabilnost takvih sistema i grafi~ki veoma lako uo~ava.
Piramida energije predstavqa dijagram u kome su prikazani podaci o ukupnoj koli~ini energije u telima svih organizama koji pripadaju razli~itim trofi~kim nivoima. Prikupqawe informacija o energiji je najkomplikovanije. Ono zahteva da se standardni uzorci organizama sa svih trofi~kih nivoa sagore u kalorimetru u prisustvu kiseonika. Danas je nivo znawa o energetskim vrednostima razli~itih organizama ve} dovoqno visok da se piramida energije ne mora uvek konstruisati na osnovu podataka dobijenih sagorevawem uzoraka, ve} se na osnovu podataka o biomasi, pomo}u odre|enih tablica, mo`e prera~unati koliko se energije nalazi na razli~itim trofi~kim nivoima.
Kroz lance ishrane hranqive materije se preme{taju s jednog trofi~kog nivoa na drugi nivo mre`e. Put hranqivih materija kroz mre`e ishrane po~iwe tako {to biqojedi prvo pojedu biqnu hranu. Hranqive materije iz biqne hrane ugra|uju se u tela biqojeda, koje zatim pojedu mesojedi. Sada se hranqive materije iz `ivotiwske hrane ugra|uju u tela mesojeda. Kada oni uginu, wihovim telima se hrane gqive i mikroorganizmi. Tako se naposletku hranqive materije iz tela uginulih organizama ugra|uju u tela razlaga~a. Dakle, kroz odnose ishrane, koji po~iwu sa biqkama, idu preko `ivotiwa, a zavr{avaju se s gqivama i mikroorganizmima, ostvaruje se jedan deo kru`ewa materije u ekosistemu.
Na svakom trofi~kom nivou u lancu ishrane nagomilava se odre|ena koli~ina organske materije, u kojoj je akumulirana odre|ena koli~ina hemijske energije. Mera akumulirane materije i energije na svakom trofi~kom nivou, kao i u ekosistemu u celini predstavqa produktivnost trofi~kog nivoa ili ~itavog ekosistema. Ona se izra`ava u kiloxulima po metru kvadratnom u toku godine (kJ/m-2/god-1). Svi organizmi u biocenozi na razli~ite na~ine i u razli~itoj meri doprinose ukupnoj produktivnosti ekosistema. Tako biqke u procesu fotosinteze u~estvuju u primarnoj produkciji. One uz pomo} Sun~eve energije od neorganskih jediwewa formiraju osnovna organska jediwewa bogata hemijskom energijom. Ukupna koli~ina organske materije koju u ekosistemu formiraju zelene biqke predstavqa bruto primarnu produkciju. Za potrebe svog rastewa i razvi}a biqke tro{e deo energije koju su proizvele u procesu fotosinteze. Preostali deo materije i energije koji biqke ne tro{e za svoje potrebe, ve} ga stavqaju na raspolagawe herbivorima, u ekosistemu predstavqa tzv. neto primarnu produkciju.
Na vi{im nivoima trofi~ke piramide, u procesu rasta i razvi}a `ivotiwskih tela, dolazi do nove sinteze organskih jediwewa, koja su, po pravilu, veoma bogata hemijskom energijom (proteini, masti). Taj deo produkcije u ekosistemu ozna~ava se kao sekundarna
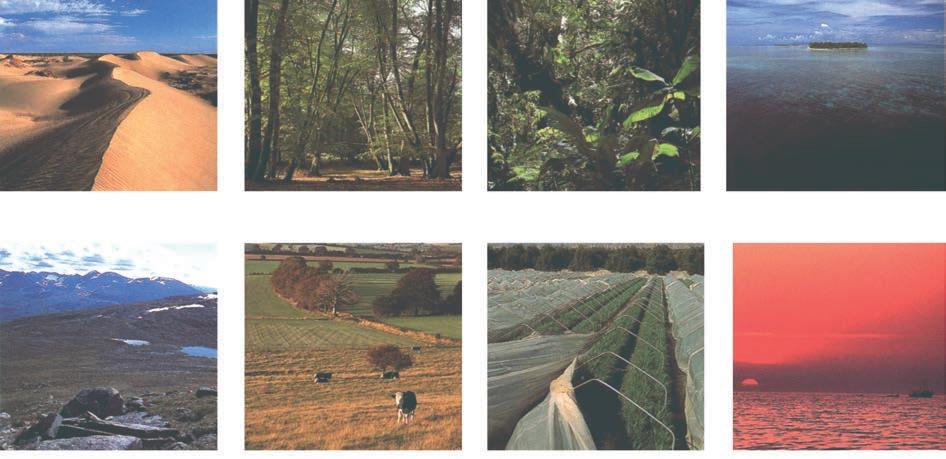
Produktivnost (h 103 kJ m-2 god-1)
Primarna produkcija u nekim prirodnim i ve{ta~kim ekosistemima
produkcija. Primarna i sekundarna produkcija zajedno predstavqa ukupnu produkciju ekosistema.
U prirodnim ekosistemima produktivnost je najveća u tropskim šumama i u toplim, plitkim delovima okeana.Visoke temperature i povoqna vla`nost u tropskim {umama veoma pogoduju rastewu biqaka. U okeanima temparatura nije tako povoqna, ali stalne vertikalne morske struje oboga}uju vodu mineralnim materijama, {to veoma pogoduje rastewu biqaka. Najmawa produktivnost se javqa u ekosistemima na krajwem severu i na najvi{im planinskim vrhovima, kao i u pustiwama.
Visoka produktivnost je zabele`ena i u agroekosistemima, bez obzira na klimatske zone u kojima se biqne kulture gaje. Redovno navodwavawe i oboga}ivawe zemqi{ta ve{ta~kim |ubrivima veoma pogoduje rastewu gajenih biqaka.
Za sve procese koji se odvijaju u ekosistemu, bilo da je re~ o fizi~kim, hemijskim ili biolo{kim, potrebna je energija. Osnovni izvor energije na planeti Zemqi je Sunce. Od trenutka kada je Zemqa nastala Sun~evo zra~ewe bez prekida dolazi do Zemqine povr{ine, nose}i sobom velike koli~ine energije.
Ogromna energija Sun~evog zra~ewa se na Zemqi tro{i na razli~ite na~ine. Veliki deo te energije se jo{ u atmosferi odbija od oblaka i vra}a nazad u vasionu. Drugi deo energije, tako|e jo{ u atmosferi, apsorbuju razli~iti molekuli ozona, vodene pare i ugqen-dioksida. Na taj na~in do Zemqine povr{ine dolazi samo jedan, znatno umawen deo ukupnog Sun~evog zra~ewa. U trenutku kada Sun~evi zraci dospeju do povr{ine Zemqe, oni osloba|aju toplotnu energiju i zagrevaju Zemqinu povr{inu i atmosferu, ~ime se stvaraju osnovni uslovi za `ivot svih `ivih bi}a. Zagrevawem Zemqine povr{ine i atmosfere gubi se energija, koja stalnim izra~ivawem u obliku toplote odlazi u vasionu. Na taj na~in energija u obliku Sun~evog zra~ewa ulazi u ekosisteme, a u obliku toplote ih napu{ta. Dakle, energija proti~e kroz ekolo{ke sisteme.
ENERGIJA SUN^EVOG ZRA^EWA
Odbijawe u vasionu
TOPLOTNA ENERGIJA
Odlazak u vasionu
Zagrevawe oblaka i atmosfere
Sunce je osnovni izvor energije i u kopnenim i u vodenim ekosistemima.
Ponovno zagrevawe Zemqe
Upijawe od strane oblaka i atmosfere
Upijawe od strane Zemqe
Rasipawe Sun~evog zra~ewa na Zemqi
Me|utim, `ivim bi}ima nije dovoqno da imaju samo odre|enu koli~inu svetlosne i toplotne energije u spoqa{woj sredini. Da bi ostvarila svoje `ivotne aktivnosti, `iva bi}a moraju raspolagati i odre|enom koli~inom unutra{we energije u svojim telima. Energija ulazi u `ive organizme preko hrane, a u hranu dospeva preko biqaka. Biqke su kao prirodne solarne fabrike. One u procesu fotosinteze usvajaju jedan deo energije Sun~eve svetlosti koja dopire do povr{ine Zemqe, pretvaraju je i skladi{te u hrani u obliku hemijske energije. @ivotiwe, gqive i mikroorganizmi mogu opstati jedino na ra~un te hemijske energije. Svi `ivi organizmi u procesu }elijskog disawa osloba|aju energiju hemijskih veza koja je akumulirana u {e}erima i drugim ugqenim hidratima. Tokom }elijskog disawa kiseonik raskida veze izme|u atoma u molekulima {e}era. U tom procesu raskidawa veza osloba|a se energija koja se koristi za sve `ivotne aktivnosti `ivih bi}a. U procesu }elijskog disawa znatan deo energije se pretvara u toplotu, koja napu{ta organizam i nepovratno se gubi odlaze}i u atmosferu.
Fotosinteza
]elijsko disawe
Fotosinteza – }elijsko disawe
Dakle, u procesu fotosinteze energija Sun~evog zra~ewa preko biqaka ulazi u biocenozu. U procesima ishrane ta energija se prenosi sa jednog na drugi nivo trofi~ke piramide. U procesu }elijskog disawa, koji se odvija na svim nivoima lanaca ishrane, energija hemijskih veza u hrani se jednim delom tro{i na ostvarivawe `ivotnih aktivnosti, a drugim delom se pretvara u toplotu i napu{ta ekosistem. Na taj na~in, i u ovom procesu koji se odvija kroz `ivu komponentu ekosistema, energija konstantno proti~e.
Da bi organizmi mogli da `ive, oni moraju da koriste hranqive materije i druge supstance iz ekosistema. Me|utim, za razliku od energije koja na Zemqu neprekidno pristi`e sa Sunca, koli~ina materije na na{oj planeti je ograni~ena. Zbog toga je u ekolo{kim sistemima morao
da se razvije precizan mehanizam prirodne obnove, odnosno biogeohemijskih ciklusa, ~ime je omogu}eno da `ivot mo`e da traje neograni~eno. Kad ne bi bilo tih ciklusa, sva materija potrebna za `ivot brzo bi se potro{ila, pa bi opstanak `ivih bi}a bio doveden u pitawe. Procewuje se da bi se sav ugqen-dioksid iz atmosfere potro{io za samo trideset pet godina ukoliko ne bi postojao mehanizam wegovog prirodnog kru`ewa.
U prirodi postoji veliki broj ciklusa kru`ewa razli~itih jediwewa i elemenata. Me|utim, za `ivot su svakako najzna~ajniji ciklusi azota, ugqenika, kiseonika i vode.
Od 100 unetih jedinica energije u telo rov~ice se ugradi svega 10 jedinica. Preostalih 90 jedinica se izgubi na disawe i razli~ite otpade.
Azot je veoma va`an gradivni element belan~evina i nukleinskih kiselina. U gasovitom stawu on ~ini ~etiri petine ~itave atmosfere. Najve}i broj `ivih organizama ne mo`e da koristi azot iz vazduha zbog toga {to su hemijske veze u molekulu gasovitog azota (N2 – dinitrogen) veoma jake. Zato biqke usvajaju azot iz zemqi{ta, gde se on nalazi u obliku razli~itih soli (nitrata, amonijum-jona). Tako usvojen azot biqke mogu da prerade i da formiraju sopstvene amino-kiseline. Sa hranom koju unose `ivotiwe usvajaju razli~ite proteine, koje potom razgra|uju i na osnovu wih sinteti{u sopstvene proteine od kojih izgra|uju svoja tela.
Dok eukariotski organizmi nemaju sposobnost usvajawa gasovitog azota, mnogi prokarioti (bakterije, modrozelene alge) koji `ive u zemqi{tu imaju sposobnost da raskidaju veze gasovitog dinitrogena (N2) i usvajaju gasoviti azot iz atmosfere. Taj va`an proces u prirodi naziva se azotofiksacija, a organizmi koji ga ostvaruju – azotofiksatori. Ovi organizmi u procesu respiracije redukuju gasoviti azot u amonijak pomo}u vodonika iz redukovanog NAD. Amonijak u formi amonijum-jona kombinuje se sa organskim kiselinama i formira amino-kiseline, od kojih su izgra|ene najzna~ajnije komponente }elija. Neki azotofiksatori, kao {to su modrozelene alge, `ive slobodno u plitkim barama i zemqi{tu. Na primer, kon~asta modrozelena alga Anabaena, (prirodno „zeleno |ubrivo”) `ivi u svim delovima Zemqe gde ima dovoqno vlage i svetlosti za weno pre`ivqavawe. Ispitivawa su pokazala da u tropskim i suptropskim oblastima azotofiksiraju}i organizmi usvajaju ogromne koli~ine gasovitog azota, koji se posle wihove smrti i razgradwe wihovih }elija osloba|a u zemqi{te. Upravo taj oslobo|eni azot koriste eukariotske zelene biqke. Zahvaquju}i wemu ukupna organska produkcija u tropskim i suptropskim krajevima je izrazito visoka.
Treba napomenuti da je agrikultura imala ogromnu korist od azotofiksiraju}ih organizama ~ak i stotinama godina pre nego {to se i{ta znalo o procesima ishrane biqaka.
amino-kiseline i proteini biqaka
azotofiksacija od prokariota usvajawe
gasoviti azot u vazduhu
industrijska proizvodwa
denitrifikacija anaerobnim bakterijama muwe
nitrati
nitrifikuju}e bakterije
rastvorqiv azot u zemqi{tu
amino-kiseline i proteini `ivotiwa
azot u humusu hrana
smrt smrt + urin i fekalije
ve{ta~ka |ubriva
upotreba |ubriva u poqoprivredi
nitrifikuju}e bakterije ENERGIJA ENERGIJA
nitriti amonijumove soli
amonijak
truqewe
Ciklus azota
Neki azotofiksatori su uspostavili veoma specifi~ne simbiotske odnose sa biqkama ili drugim organizmima u zemqi{tu. Na primer, bakterija Rhizobium koja `ivi u zemqi{tu i hrani se saprotrofski, mo`e stupiti u vezu sa }elijama kore korena leguminoznih biqaka (familija Fabaceae). Bakterija u korenu prouzrokuje specifi~an rast tkiva i formirawe mawih kvr`ica oko „inficiranih” }elija. U kvr`icama su uslovi za rast bakterija veoma povoqni. One u tim uslovima sinteti{u enzim nitrogenazu, koja je u stawu da redukuje gasoviti azot u amonijak. Energiju za ovu redukciju bakterije dobijaju iz {e}era koje proizvodi biqka doma}in. Bakterije u svojim metaboli~kim procesima od amonijaka grade razli~ite amino-kiseline, koje za svoje potrebe koristi i biqka doma}in. Odnos izme|u bakterije i biqke ozna~en je kao mutualizam jer bakterija za redukciju azota u amonijak koristi {e}er koji je proizvela biqka, a biqka zauzvrat koristi amino-kiseline koje je proizvela bakterija. Biqka sa ovakvim korenovima u stawu je da `ivi i uspe{no raste i na zemqi{tima koja su ina~e siroma{na azotovim jediwewima.
Deo azota dolazi do zemqi{ta i bez posredstva azotofiksiraju}ih organizama. U prisustvu svetlosne i elektri~ne energije muwa u atmosferi, gasoviti azot se jedini sa vodonikom i formira amonijak (NH3) koji ki{e spiraju do zemqi{ta.
Razli~ita azotova jediwewa natalo`ena u zemqi{tu biqke usvajaju svojim korenovim sistemima. Usvojeni azot one ugra|uju u belan~evine i druga zna~ajna jediwewa od kojih su izgra|ena wihova tela. U odnosima ishrane azot preko biqaka prelazi s jednog na drugi nivo trofi~ke piramide, ugra|uju}i se u tela `ivotiwa i drugih organizama. Na kraju, po{to `iva bi}a umru (uginu), wihova tela se razla`u, a azot iz organskih jediwewa ponovo prelazi u neorganski oblik, tako da opet mo`e krenuti u proces kru`ewa. Tokom bakterijske dekompozicije azot iz proteina, amino i nukleinskih kiselina se, u procesu amonifikacije,pretvara u amonijak, koji u hemijskim reakcijama sa razli~itim solima u zemqi{tu formira amonijumove soli. Ove soli su rastvorqive u vodi, pa se brzo distribuiraju u zemqi{tu i na taj na~in postaju lako dostupne biqkama. Urea, koja se nalazi u urinu `ivotiwa, u procesu amonifikacije tako}e se pretvara u amonijak.
U zemqi{tu `ive i hemosintetske bakterije sposobne da na ra~un energije razli~itih hemijskih jediwewa u procesu hemosinteze sinteti{u {e}ere. U wihove hemosintetske procese ukqu~ena su i azotova jediwewa koja se nalaze u zemqi{tu. Pri tom dolazi do konverzije amonijumovih soli u nitrite, pa se ~itav proces naziva nitrifikacija, a bakterije koje ga ostvaruju – nitrifikuju}e bakterije. Jedna grupa nitrifikuju}ih bakterija, kao {to je Nitrosomonas, konvertuje amonijumove soli u nitrite. Druge bakterije, kao {to je Nitrobacter, konvertuju nitrite u nitrate. Azot u obliku nitratnih jona korenovi biqaka najlak{e usvajaju iz zemqi{ta.
U zemqi{tu postoji jo{ jedna zna~ajna grupa bakterija koja u~estvuje u procesu kru`ewa azota u prirodi. To su denitrifikuju}e bakterije koje u anaerobnim uslovima (npr. kada je zemqi{te du`e vreme poplavqeno), u procesu specifi~ne hemosinteze, redukuju nitrate i amonijumove soli u gasoviti azot. Ovaj proces naziva se denitrifikacija i ima potpuno suprotan smer i efekat od nitrifikacije. U prirodnim uslovima odnos razli~itih grupa bakterija – azotofiksatora, nitrifikatora i denitrifikatora – veoma je izbalansiran, tako da se proces kru`ewa azota odvija bez ve}ih problema po `ivot biqaka i ostalih ~lanova biocenoze. Denitrifikuju}e bakterije u agroekosistemima mogu prouzrokovati odre|ene {tete s obzirom na to da se wihovom aktivno{}u smawuje koli~ina dostupnog azota, pa samim tim i prinos gajenih kultura. Zbog toga poqoprivrednici dreniraju zemqi{te, ~ime se smawuje opasnost od dugotrajnijeg plavqewa i pojave anaerobnih uslova koji bi intenzivirali proces denitrifikacije. U isto vreme, ~ovek ima i velike koristi od denitrifikuju}ih bakterija, budu}i da ih intenzivno koristi u pre~i{}avawu otpadnih voda i zaga|enog zemqi{ta.
@ivot na Zemqi zasnovan je na ugqeniku kao centralnom molekulu svih `ivih bi}a. Ugqenik se u prirodi nalazi u obliku gasovitog ugqen-dioksida u atmosferi, rastvorenih hidrokarbonata (bikarbonata) u vodi i vezanih karbonata u stenama litosfere. U procesu fotosinteze biqke vezuju atome ugqenika iz atmosferskog ugqen-dioksida, proizvode}i jednostavne {e}ere. Tokom `ivotnih procesa biqaka i `ivotiwa molekuli ugqenika se preme{taju kroz ~itavo telo organizma, ugra|uju}i se u sve zna~ajnije organske molekule (kao {to su ugqeni hidrati, masti, belan~evine i nukleinske kiseline). Jedan deo tog ugqenika se u telima `ivih organizama tokom }elijskog disawa vezuje s kiseonikom, tako da ponovo formira ugqen-dioksid, koji se vra}a u atmosferu. Ugqenik vezan u organskim jediwewima `ivih bi}a se u odnosima ishrane prenosi s jednog nivoa trofi~ke piramide na drugi. Kada `ivo bi}e umre (ugine), tokom procesa razlagawa ugqenik se ponovo vezuje s kiseonikom i u obliku ugqen-dioksida opet vra}a u atmosferu, odakle ponovo ulazi u procese kru`ewa izme|u `ive i ne`ive prirode.
Znatan deo procesa kru`ewa ugqenika ostvaruje se i u kontaktu atmosfere i hidrosfere, pri ~emu zna~ajnu ulogu imaju i vodene biqke. U morima i okeanima uravnote`eni sistem CO2–bikarbonat–karbonat uti~e na regulisawe stawa CO2 na ~itavoj Zemqi. Velike koli~ine rastvorenih bikarbonata re~nim tokovima dolaze do mora i okeana. Dejstvom zelenih biqaka bikarbonati se jednim delom pretvaraju u nerastvorqive karbonate koji se talo`e, a drugim delom u rastvorqivi ugqen-dioksid koji }e, u zavisnosti od svoje trenutne koncentracije, ostati rastvoren u vodi, ili }e se razmeniti s atmosferom.
Jedan od sporednih oblika ugqenika koji se vra}aju u atmosferu je metan (CH4). On nastaje u toku fermentacije organske materije u crevima mnogih biqojeda, ili u toku meta-
ugqen-dioksid (SO2) u vodi i vazduhu :
Ciklus ugqenika
boli~kih aktivnosti fermenti{u}ih bakterija. Oslobo|eni metan se u atmosferi fotohemijski oksidi{e, pa tako ugqenik u wemu ponovo postaje dostupan za proces kru`ewa. Jedan deo ugqenika, koji se u telima `ivih bi}a ugra|uje u ~vrste delove skeleta ili mehani~kih tkiva (kosti, qu{ture, odrvenela stabla), ~esto ne stigne da se prevede u ugqen-dioksid (ili hidrokarbonate u vodenoj sredini), ve} se talo`i u obliku razli~itih karbonatnih stena ili fosilizuje u obliku ugqa, nafte, odnosno gasa. Taj deo ugqenika se privremeno „blokira” i iskqu~uje iz procesa kru`ewa ugqenika. On se u ovaj proces ukqu~uje sa odre|enim zaka{wewem, posle sagorevawa fosilnih goriva ili posle laganog rastvarawa karbonatnih stena koje dolaze u kontakt s vodom.
@ivot najve}eg broja organizama na Zemqi ne mo`e se ni zamisliti bez kiseonika. Gotovo sav kiseonik u atmosferi nastao je u procesu fotosinteze. Jedan deo kiseonika koji su biqke
neorganska materija
disawe
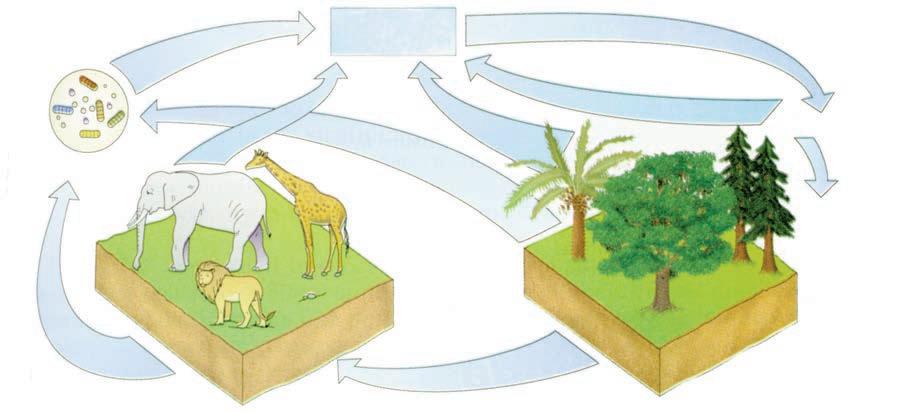
razlagawe
ishrana
kiseonik fotosinteza
organska materija
Ciklus kiseonika
oslobodile u procesu fotosinteze odlazi u najvi{e slojeve atmosfere, formiraju}i za{titni ozonski omota~. Drugi deo kiseonika ostaje u ni`im delovima atmosfere. Wega koriste sva `iva bi}a u procesu }elijskog disawa. U tom procesu kiseonik raskida veze izme|u atoma u molekulima {e}era, vezuje se za ugqenik formiraju}i ugqen-dioksid, a on potom napu{ta organizam i ponovo odlazi u atmosferu. Na taj na~in su procesi kru`ewa kiseonika i ugqenika me|usobno tesno povezani kroz procese fotosinteze i }elijskog disawa koji se neprekidno odvijaju u svim ekosistemima.
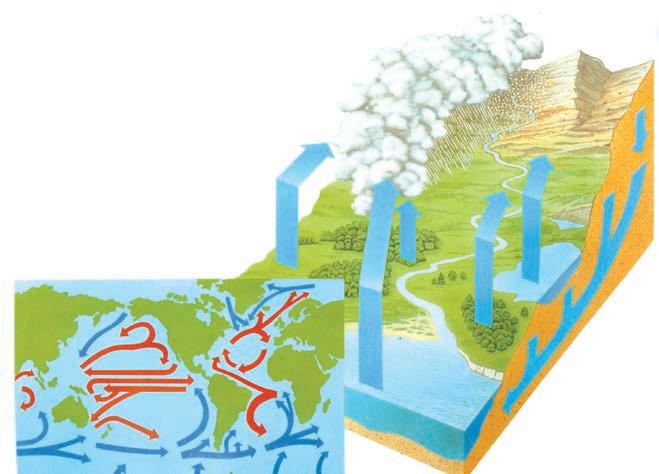
Voda je osnov svih oblika života na Zemqi. Molekuli vode neprekidno kruže između hidrosfere, listofere, atmosfere i biosfere. Sa svih vodenih površina na Zemqi voda neprekidno isparava i odlazi u više delove atmosfere, gde se zbog nižih temperature kondenzuje i u vidu vodenih taloga vraća se na kopno i u okeane. Deo vodenih taloga koji dospe na kopno ponire i prelazi u podzemne vode, koje posebnim tokovoima na kraju dospevaju ponovo do mora i okeana, ili do nadzemnik kopnenih voda, odakle opet isparavaju i vraćaju se u ciklus kružewa. U tom neprekidnom ciklusu kružewa značajan deo puta predstavqaju i tela živih bića, koja izgrađuju sve ekosisteme na Zemqi. Deo vode s površine zemqišta ulazi u sastav živih bića, odakle isparavawem i izlučivawem ponova napušta te žive sisteme. Na mnogim mestima na kopnu put i brzina kružewa vode u najvećoj meri zavise upravo od živih bića koja na tim mestima žive.
kru`ewe materije
protok hemijske energije
protok svetlosne i toplotne energije
Zbirna {ema kru`ewa materije i proticawa energije u ekosistemu
gubitak toplote urespiracijii tokom svihhemijskih procesau metabolizmu saprotrofi
sekundarni potro{a~i mesojedi
primarni potro{a~i biqojedi
primarni proizvo|a~i zelene biqke
Sun~evo zra~ewe
svetlosna energija pretvorena u hemijsku energiju u fotosintezi Sun~eva svetlost
neorganska materija
Kao {to je ve} re~eno ekosistemi nisu stati~ni i nepromenqivi skupovi `ivih bi}a u prostoru. Dnevne, mese~ne i sezonske promene koje se de{avaju u `ivotnim zajednicama redovna su pojava u prirodi. Te promene ne dovode do su{tinskih izmena u sastavu i osobinama `ivotne zajednice. One predstavqaju samo posledicu vremenske organizacije koja je omogu}ila da ~lanovi biocenoze sa razli~itim potrebama i mogu}nostima mogu opstati u jednom istom ekosistemu u razli~ito vreme.
Nasuprot dnevnim, mese~nim i sezonskim promenama, u mnogim ekosistemima de{avaju se zna~ajne promene koje u kra}em ili du`em vremenskom periodu dovode do bitnih izmena u sastavu biocenoze. Na taj na~in dolazi do zamene jedne biocenoze drugom, odnosno do evolucije ekosistema. Taj proces smewivawa biocenoza na jednom istom stani{tu tokom vremena naziva se sukcesija. Kao {to u prirodi sve ima svoj po~etak i svoj kraj, tako se i u razvoju i evoluciji ekosistema mogu prepoznati po~etne, prelazne i zavr{ne faze sukcesije.
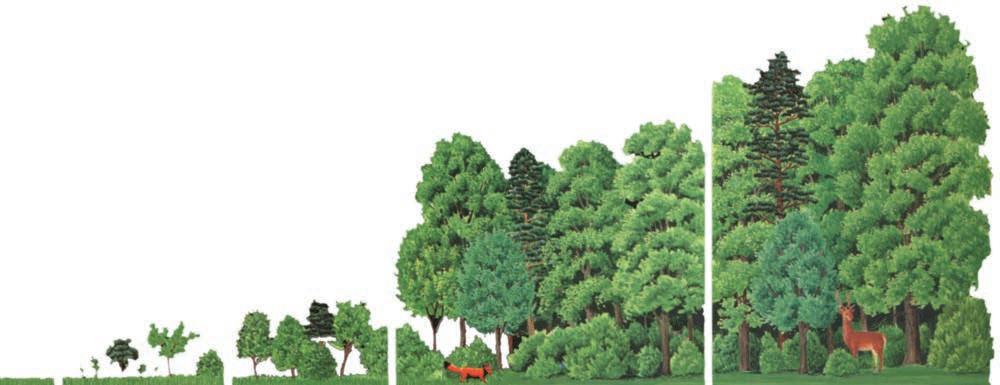
pionirska zajednica
Prostor na kojem se danas javqaju najslo`eniji ekosistemi na Zemqi, kao {to su, na primer, ki{ne {ume u tropima, nije oduvek bio tako bogat i raznovrstan u sastavu `ivotne zajednice. Razvoj tih najslo`enijh ekosistema zapo~eo je u dalekoj pro{losti, u vreme kada se kopno tek izdiglo iz mora ili kada se more tek povuklo s kopna. Tada, na tim novim kopnenim povr{inama, nije bilo `ivih bi}a. Postojali su samo fizi~ki, hemijski i klimatski elementi stani{ta. Taj biolo{ki prazan prostor veoma brzo po~iwu da naseqavaju zeqaste biqke i sitnije `ivotiwe, formiraju}i prve siroma{ne pionirske zajednice. Tokom vremena te pionirske zajednice postepeno se oboga}uju novim vrstama `ivih bi}a, koje svojim `ivotnim aktivnostima polako po~iwu da mewaju abioti~ke karakteristike samog stani{ta. Najzna~ajnije promene do kojih dolazi usled rada ~lanova pionirske zajednice svakako su formirawe i postepen razvoj zemqi{ta. Sa pojavom zemqi{ta, koje se stalno oboga}ivalo
stvaraju se sve povoqniji uslovi za `ivot biqaka, a samim tim i povoqniji uslovi `ivota za sve ostale ~lanove biocenoze. Nekada biolo{ki prazan prostor naseqava sve ve}i i ve}i broj novih vrsta `ivih organizama, koji svojim radom po~iwu su{tinski da mewaju op{te uslove `ivota u stani{tu. U tako izmewenim uslovima `ivota oni prvi, pionirski organizmi, koji su se doselili u prazan prostor i koji su zapo~eli ~itav proces sukcesije, polako se povla~e i na kraju potpuno napu{taju novonastalu `ivotnu zajednicu. Pionirska zajednica je zamewena prvim slede}im prelaznim stadijumom u sukcesiji ekosistema.
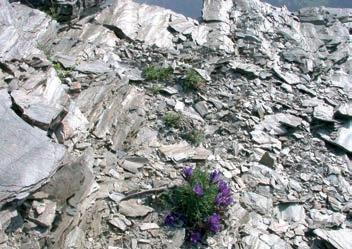
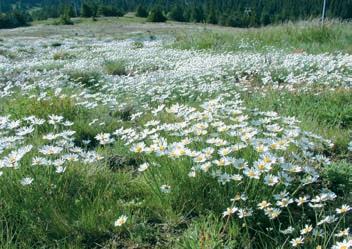
Sukcesija kopnenih ekosistema po~iwe sa osvajawem golih stena (1). Nakog dugog vremenskog perioda formiraju se bujne livade (2) koje na kraju prelaze u {ume (3)
Novonastala biocenoza se sve vi{e oboga}uje, odnosi koji vladaju izme|u wenih ~lanova postaju sve slo`eniji, zemqi{te se sve vi{e razvija. Stvaraju se uslovi za pojavu prvih drvenastih biqaka. Prvi `bunovi i nisko drve}e polako istiskuju mnogobrojne zeqaste biqke. Tako se formira nova prelazna biocenoza, koja zamewuje prethodnu.
Tokom dugog vremena na jednom istom mestu do{lo je do mnogobrojnih smena biocenoza u procesu sukcesije. Ipak, na kraju se razvijaju biocenoze maksimalno uskla|ene sa optimalnim mogu}nostima koje odre|eni prostor pru`a. Tako nastale biocenoze predstavqaju zavr{nu fazu u sukcesiji i u ekologiji se nazivaju klimaks zajednicama
jezero sa vodom siroma{nom u nutrijentima
talo`ewe materijala iz okoline jezera
u jezeru su se pojavile flotantne i planktonske biqke
po dnu jezera su se ukorenile podvodne vodene biqke
kopnene biqke naseqavaju obalu jezera
{umske zajednice sa tresavama i mo~varama
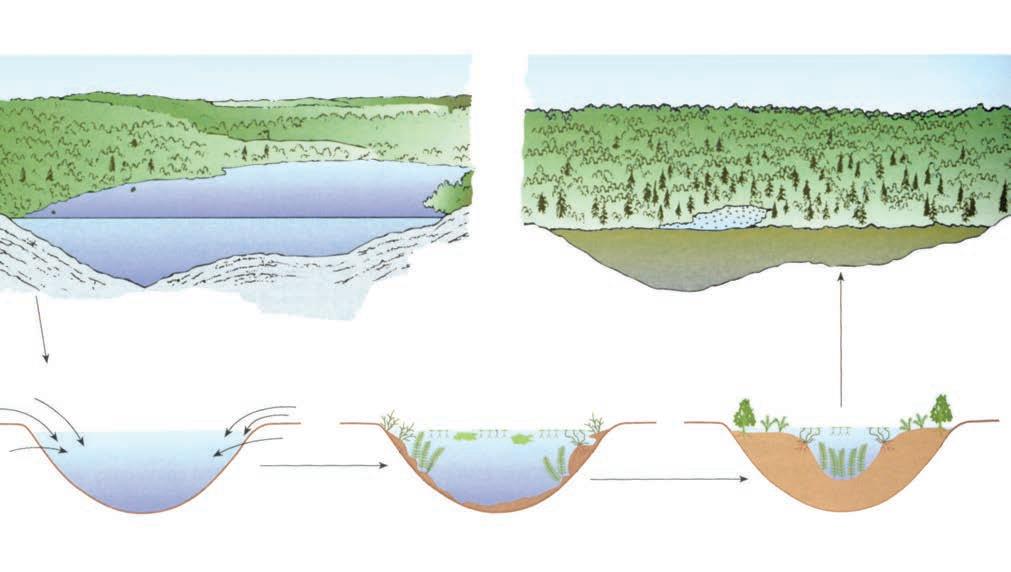
na dnu se talo`i sve vi{e sedimenata
Sukcesija vodenih ekosistema
drve}e kre}e da naseqava obalu jezera i ubrzava proces prelaska vodenog u kopneni ekosistem
Po pravilu, u prirodi se tokom sukcesije postepeno pove}ava broj vrsta u biocenozi i uslo`avaju odnosi koji izme|u wih vladaju. Takve promene predstavqaju naprednu ili progresivnu sukcesiju. Me|utim, postoje i promene koje vode u suprotnom smeru, odnosno ka smawivawu broja vrsta, pojednostavqewu strukture i smawivawu svih funkcija koje se ostvaruju u ekosistemu. Te promene predstavqaju nazadnu ili regresivnu sukcesiju. U prirodi su regresivne sukcesije retka pojava. One mogu nastati usled nekih prirodnih nepogoda –prirodnog zahla|ewa, po`ara, promene odnosa mora i kopna, promene re~nog toka i sl. Me|utim, zbog sve ve}eg negativnog dejstva ~oveka na prirodu, u dana{we vreme nazadne sukcesije uzimaju sve vi{e maha. Za razliku od prirodnih sukcesija koje se spontano doga|aju u prirodi, promene koje se de{avaju usled delovawa ~oveka predstavqaju neprirodne ili antropogene sukcesije. Neprirodne sukcesije imaju po pravilu, nazadan karakter. Izuzetno, ~ovek svojim aktivnostima mo`e dovesti i do pokretawa i ubrzavawa naprednih sukcesija. Primer za to predstavqaju qudske aktivnosti na vezivawu i obra stawu peska u pustiwama {irom sveta.
Lice planete Zemqe nalazi se u stalnom procesu promena. Toplota Sun~evog zra~ewa stvara vetrove, okeanske struje i uslovqava isparavawe vode. Uz to, energija iz dubine Zemqe dovodi do pomerawa ogromnih masa stena, prouzrokuju}i na taj na~in mnoge vulkanske erupcije, zemqotrese, uzdizawe planina, pomerawe kontinenata i druge velike promene u prirodi. Nivoi mora i okeana se, tako|e, stalno podi`u i spu{taju, a klima se znatno mewa u hiqadugodi{wim intervalima. Zbog toga su se `ivotne zajednice, pored lokalnih promena koje su vezane za pojavu sukcesija, morale prilago|avati i svim tim globalnim promenama
Klima na Zemqi nama mo`da izgleda stabilno. Sezone se pravilno smewuju tokom svake godine, a bitnije razlike u klimatskim prilikama tokom tih sezona nisu zabele`ene od kada ~ovek prou~ava klimu na Zemqi. Me|utim, tokom duge istorije temperatura Zemqe se znatno mewala. Pre oko 10 000 godina veliki delovi Evrope, Severne Amerike i severne Azije bili su prekriveni ledenim pokriva~em. Taj period u Zemqinoj istoriji naziva se veliko ledeno doba.
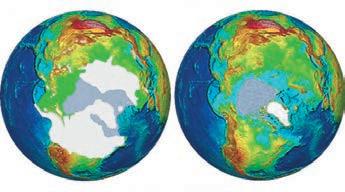
U to vreme desile su se zna~ajne promene u ekosistemima u delovima Zemqe u kojima je vladalo ledeno doba. Mnoge vrste su zbog niskih temperatura izumrle, neke su se odselile u toplije krajeve, a vrste koje su bile otporne na ekstremne klimatske uslove doselile su se u ove hladne krajeve. Pored toga, mnoge vrste koje su nekada `ivele u povoqnijim uslovima razvile su mehanizme da opstanu i u novonastaloj situaciji. Jednostavno, one su evoluirale. Na taj na~in, Barno jezero na Durmitoru. – Zabarivawem obale jezerski ekosistem polako prelazi u {umski.
Polo`aj severne ledene kalote u vreme velikog ledenog doba (1) i danas (2) 12
usled globalnih klimatskih promena u vreme velikog ledenog doba, tokom procesa izumirawa, emigracije, imigracije, prilago|avawa i evolucije do{lo je do zna~ajnih promena u sastavu i strukturi biocenoza na veoma velikim prostorima Zemqe na kojima se ose}ao uticaj globalnog zahla|ewa.
Na najvi{im planinama se jo{ uvek nalaze pravi gle~eri (1), oko kojih se razvijaju posebni ekosistemi sa dominacijom poleglih polarnih vrba (2)
Geografski položaj i raznovrsnost abiotičkih faktora i wihova specifična kombinacija omogućili su da se na terirotiji naše zemqe steknu uslovi za formirawe velikog broja različitih ekosistema, u kojima živi izuzetno veliki broj različitih vrsta.
Osnovne abiotičke činioce diverziteta ekosistema predstavqaju orografsko-geološke i klimatske karakteristike teritorije naše zemqe. U makroreqefu Srbije izdvajaju se dve osnovne celine: a) Panonski basen (ravničarski regioni panonske nizije) i b) brdsko-planinska oblast centralnog područja zemqe. Ove dve geomorfološki dobro izdiferencirane celine povezane su nizom postepenih prelaza.
Panonski basen obuhvata: aluvijalne ravni i rečne terase duž velikih reka, lesne zaravni visine između 100 i 140 m i brdsko-planinska uzvišewa, odnosno ostrvske planine Fruškugoru i Vršačke planine. Geološku podlogu aluvijalnih ravni čine rečni nanosi, kao što su pesak, šqunak i muq, dok je les matična stena lesnih platoa. Panonske planine u Vojvodini raznovrsnog su geološkog sastava, ali osnovnu geološku masu čine silikatne metamorfne stene.
Brdsko-planinska oblast izvaredno je heterogena i složena. U osnovi je sačiwava 5 planinskih sistema različite starosti: a) Rodopske planine, odnosno ogranci rodopskog sistema u
Osnovna reqefna karta Srbije
severnoj,centralnojijužnoj Srbiji;b)Karpatske,mlađe venačneplanine,čijijužni ograncidopirudoseveroistočneSrbije;v)Balkanske mla|evenačneplanine u istočnoj i jugoistočnojSrbiji;g)Dinarske mlađevenačneplanineMetohije i zapadneSrbije;id)Skardo-pindske mlađevenačneplanine,kojeobuhvataju Šar-planinu i weneogrankenaKosovu i Metohiji.
Osnovnageolo{ka kartaSrbije
Navedeniplaninskisistemigeološkisuveomaheterogeni.Rodopskaplaninskamasa sastavqenajepretežnood starihsilikatniheruptivnih stena,kojesuformiraleprvu kopnenumasuBalkanskogpoluostrva.Karpatskiplaninskisistem useveroistočnojSrbijisastavqenjeodstarihmetamorfnihstenaprekokojihsu najvećimdelomnavučenemoćnenaslagemezozojskihkrečwaka,nakojimaseformirao tipičnokarstnireqef.Planinebalkanskogsistema geološkisuveomaheterogeneiraznovrsne.Glavnugeološkumasuplaninaovogplaninskogsistemasačiwavajurazličitesilakatnemetamorfnestene,kojesunanekimmestimaprekrivenekrečwacima.Dinarskiplaninski sistem sastavqenjenajvećimdelomodkrečwačkihstena,kojesunapojedinimmestima prošaranesilikatima.Skardo-pindskiplaninskisistem izgrađujupretežnostaremetamorfnesilkatnestene,izmeđukojihsemestimičnouzdižukrečwačkekupe.
ZahvaqujućisvomgeografskompoložajuujugoistočnojEvropiikarakteristikamareqefa,teritorijanašezemqejeiuklimatskompogledu,veomakompleksnaiheterogena.Unašoj zemqimoguserazlikovati2osnovnatipazonalneklime:umerenokontinentalna ikontinentalna.Takođe,zbogplaninskogreqefaiispoqenihfenomenavisinskogzonirawaklimatskihčinilaca,uplaninsko-visokoplaninskihregionimanašezemqe,izraženajeplaninska klima.Oviosnovnitipoviklime,zbogmeđusobnihuticaja,pokazujunizprelaznihoblika ilivarijanti.
Umerenokontinentalnaklima zahvatanajvećideozapadne,centralneijužneSrbije.U zavisnostioduticajasjuga,severozapadaiistoka,umerenokontinentalnaklimasekodnas diferenciranadvaosnovnapodtipaičitavnizrazličitihgeografskihvarijanti.
ZapadnideloviSrbijesupoduticajimavlažneatlantskeklime,kojaprekozapadnih delovaBalkanskogpoluostrva,posebnoprekoDinarskihplaninadopirudoovihdelova Srbije.Naovompodručjuvladaposebanoblikhumidneumereno-kontinentalneklime (ilirskavarijanta),kojiodlikujerelativnovelikakoličinompadavina tokomgodine(od720do 900mm)iodsustvosušnogipolusušnogperioda.
UcentralnimiistočnimdelovimaSrbije,poduticajimakontinentalneklimesaistoka iegejskevarijantemediteranskeklimesajuga,javqaseobliksemiaridneumerenokontinentalneklime (mezijskavarijanta).Odlikeovogpodtipaklimesurelativnohladneiumereno
Osnovna klimatska karta Srbije
vlažne zime, dok su leta topla i suva (polusušna). Sredwe godišwe temperature variraju između 9,5 – 11,5°S, a sredwe januarske između -1,9– 0,7°S. Ukupna godišwa količina padavina je između 620 i 760 mm, s optimumom u maju i junu; period leto – jesen bogatiji je padavinama u odnosu na period zima – proleće. Sušnog perioda nema, dok polusušni traje dva-tri meseca.
Kontinentalna ili stepska klima karakteristična je za severni ravničarski deo Srbije, odnosno za južne delove Panonske nizije u Vojvodini. Osnovne karakteristike kontinentalne panonske klime ogledaju se u sredwim godišwim temperaturama između 10,2 – 11,7°S, sredwim januarskim između -1,4 i -2,1°S, godišwim količinama padavina koje variraju između 520 i 590 mm. U letwem periodu izraženi su jedan sušni i četiri polusušna meseca. Kontinentalna klima tako|e se odlikuje i oštrim zimama s apsolutnim minimumima i do -30°S, kao i većim temperaturnim ekstremima, čiji dijapazon između apsolutnih minimuma i maksimuma iznosi čak i do 80°S.
Planinska klima javqa se na višim delovima naših planina. Wene karakteristike jesu niske sredwe godišwe temperature između 0,5 – 5°S, sredwe januarske temperature između -6 i -8°S i dugi periodi, od 3 do 6 meseci s negativnim sredwim mesečnim temperaturama. U odnosu na nadmorske visine do kojih se uzdižu najviši vrhovi, i u okviru planinske klime moguće je razlikovati različite varijante. Tako se na najvišim vrhovima najviših planina javqa alpijska varijanta, na nešto mawim visinama subalpijska, a na još nižim planinska (montana)
Zbog velike raznovrsnosti orografskih, geoloških i klimatskih prilika na prostoru naše zemqe prisutna je i izuzetno velika raznovrsnost ekosistema, koja je toliko velika da, po mišqewima mnogih ekologa, teritorija naše zemqe predstavqa jedan od najznačajnijih evropskih centara eksosistemskog diverziteta.
Ekosistemski diverzitet Srbije se u dobroj meri može sagledati i uzimawem u obzir raznovrsnosti i specifičnosti biqnih zajednica, koje predstavqaju osnovnu strukturnu i produkcionu komponentu svih kopnenih ekosistema. Na osnovu rezultata savremenih istraživawa, procewuje se da samo na teritoriji Srbije danas egzistira više od 600 različitih biqnih zajednica.
U odnosu na tip rasprostrawewa, svi ekosistemi se grubo mogu podeliti na dve grupe. Prvu grupu čine ekosistemi koji imaju široko zonalno rasprostrawewe (zonalni ekosistemi), koje je pre svega uslovqeno zonalnim smewivawem klimatskih pojaseva. Drugu grupu čine ekosistemi koji nemaju zonalan raspored u prostoru.
Ekosistemi termofilnih submediteranskih listopadnih šuma belog i crnog graba
Ekosistemi mezofilnih listopadnih šuma kitwaka, graba i bukve
Ekosistemi termofilnih listopadnih hrastovih šuma centralnih i istočnih delova Balkanskog poluostrva
Ekosistemi termofilnih listopadnih šuma u šumostepskom području severoistočnih delova Srbije
Ekosistemi kserofilnih stepa
Ekosistemi frigorifilnih četinarskih šuma borealnog tipa
tip
Submediteranska varijanta mediteranske klime
Humidna varijanta umereno-kontinentalne klime
Semiaridna varijanta umereno-kontinentalne klime
Kontinentalna (stepska) klima
Kontinentalna (stepska) klima
Kontinentalna varijanta planinske klime
Ekosistemi frigorifilnih četinarskih šuma balkanskih endemoreliktnih borova Mediteranska varijanta planinske klime
Ekosistemi subalpijske žbunaste vegetacije Subalpijska varijanta planinske klime
Ekosistemi alpijskih rudina, pašwaka i kamewara
Alpijska varijanta planinske klime
Osnovna vegetacijska karta Srbije
U odnosu na klimatske zone, na horizontalnom i vertikalnom profilu naše zemqe moguće je razlikovati 9 osnovnih tipova zonalnih ekosistema.
Pored zonalnih, na prostoru Srbije postoji je i izuzetno veliki broj različitih nezonalnih ekosistema, kojima pripadaju mnogobrojne zajednice žbuwaka, šibqaka, šikara, livada, pašwaka, kamewara, stena, sipara, tresava, slatina, vodenih i obalnih zajednica, kao i najrazličitijih korovskih i ruderalnih zajednica na urbanim i ruralnim staništima.

Biosferu ili `ivotnu sredinu na planeti Zemqi savremeni ~ovek ugro`ava u meri koja preti da ugrozi i wegov sopstveni opstanak.
planeta, na{a jedina
Ograni~eni prirodni resursi, naro~ito biolo{ki, brzo i nepovratno se gube a da toga ~esto nismo ni svesni. Zaga|ivawe vazduha, vode i zemqi{ta, pa samim tim i hrane, poprima dramati~ne razmere i posledice. Zbog toga se neizbe`no name}e osnovno pitawe: „Mogu li se, i koliko dugo, priroda i biosfera opirati agresivnoj ambiciji savremenog ~oveka da ih podredi sebi, da wima u potpunosti ovlada i da ih maksimalno iskori{}ava, umesto da ih racionalno koristi?”Svesni te`ine tog pitawa, qudi su danas, vi{e nego ikada ranije, zabrinuti za svoj opstanak. Zbog toga su posledwe decenije HH veka u velikoj meri bile obele`ene razli~itim programima i akcijama u oblasti za{tite, obnove i unapre|ivawa `ivotne sredine. Sasvim je sigurno da }e i ~itav XXI vek biti u znaku re{avawa nasle|enih i novonastalih problema vezanih za zaga|ivawe i za{titu `ivotne sredine na globalnom, regionalnom i lokalnom planu.
Po{tovawe eko lo{kih zakonitosti i primena osnovnih znawa iz ekologije, kao i dosada{wa iskustva u za{titi `ivotne sredine daju, ipak, veliku nadu budu}im generacijama. Jedino pitawe koje se postavqa je da li }e ta znawa biti upotrebqena za dobrobit svih, ili }e ekonomski interesi mo}nih pojedinaca i mawih zajednica povu}i ~itavu civilizaciju u propast i nepovrat.
Kada govorimo o promenama u prirodi koje su nastale delovawem ~oveka, mislimo na savremenog predstavnika vrste Homo sapiens, razumnog, inteligentnog i sposobnog da, zahvaquju}i civilizacijskim tekovinama, oru|ima i oru`jima, osvoji i najnepristupa~nije delove planete Zemqe. Budu}nost bi, me|utim, bila izvesna da nije wegove `eqe i neograni~ene ambicije da potpuno ovlada prirodom i da je maksimalno iskori{}ava radi stvarawa {to ve}eg profita i brzog ekonomskog razvoja.
Uni{tena priroda
Za razliku od savremenog ~oveka, takve ambicije i uticaje na prirodu sigurno nemaju „primitivniji” predstavnici na{e vrste kao {to su Eskimi iz arkti~ke tundre, Pigmeji iz tropske ki{ne {ume, Bu{mani iz ju`noafri~kih pustiwa ili Indijanci iz severnoameri~kih prerija. Oni `ive, ili su, pre nego {to je prevladala savremena civilizacija, `iveli u savr{enom skladu sa svojom `ivotnom sredinom.
Savremeni ~ovek Bu{mani iz ju`noafri~kih pustiwa i polupustiwa
^ovek je kosmopolitska vrsta koja je, neposredno ili posredno – preko svojih proizvoda, naj~e{}e otpada – dospela na gotovo svako mesto planete Zemqe, a zapo~ela je i ozbiqno osvajawe svemira. Pored toga, zahvaquju}i razvoju nauke i medicine ~ovek je jedina vrsta koja se „otrgla” prirodnim mehanizmima kontrole rasta svojih populacija, dostigavši krajem prve decenije XXI veka brojnost od sedam milijardi pripadnika. Savremeni ~ovek je, za razliku od svih drugih `ivih bi}a, i „univerzalni potro{a~” kome su dostupni gotovo svi ovozemaqski prirodni resursi.
Zaboravqaju}i ili ne shvataju}i da je `ivotna sredina, u stvari, vrlo konkretan ekosistem, sa svim svojim zakonitostima, uslovqenostima i ograni~ewima u pogledu kapaciteta i mogu}nosti obnove, savremeni ~ovek je nemilice iskori{}ava i zaga|uje na najrazli~itije na~ine. Posledice koje iz toga proizlaze sve vi{e i sve drasti~nije se manifestuju ne samo na lokalnom i regionalnom ve} i na globalnom nivou. Ogromna prostranstva prirodnih ekosistema su uni{tena, mnoge vrste biqaka i `ivotiwa su ve} nestale ili su kriti~no ugro`ene, more je zaga|eno, sastav atmosfere se promenio, Zemqa postaje sve toplija, a nivo mora je po~eo lagano da se podi`e. Najizra`eniji oblici ugro`avawa prirode su:
• zaga|ivawe atmosfere koje dovodi do promene klime, podizawa nivoa svetskog mora i o{te}ewa ozonskog omota~a,
• zaga|ivawe kopnenih voda i svetskog mora,
• zaga|ivawe zemqi{ta,
• uni{tavawe prirodnih ekosistema i
• uni{tavawe pojedina~nih vrsta.
Svi pomenuti oblici ugro`avawa prirode, kada se posmatraju pojedina~no, ostavqaju velike posledice na ukupne odnose u biosferi. Me|utim, kada se wihovi negativni uticaji saberu, situacija postaje dramati~na, a posledice nepredvidive. Da zlo bude ve}e, promene koje su prouzrokovane ~ovekovim delovawem de{avaju se tolikom brzinom da priroda ne mo`e sama da se obnovi i oporavi.
Tragovi nestalih civilizacija
Severnoameri~ki Indijanac
Prerijski bizon – bio je `ivotni resurs severnoameri~kih indijanaca sve dok se nije pojavio savremeni lovac
Prometna ulica u velikom gradu
Sudbina nekada mo}nih civilizacija koje su nastajale, razvijale se i nestajale na obalama Sredozemnog mora najboqa je opomena za savremenog ~oveka. Mo} Egipta, Gr~ke i Rima bila je zasnovana ne samo na dobroj organizaciji wihovih dr`ava ve} i na prirodnim bogatstvima prostora u kojima su se razvijali. Kada su potro{ena prirodna bogatstva, oslabile su dr`ave i nestala ~itava carstva.
Naime, nekada je ~itav Mediteran bio pod gustom {umskom vegetacijom. Civilizacije koje su se tu razvijale neprekidno su uni{tavale wegovo neprocewivo {umsko blago. Sa {umama je nestajalo i mediteransko zemqi{te koje je hranilo generacije predaka savremene evropske civilizacije. Tako su, pored drugih brojnih razloga, nemilosrdne seče šuma doprinele slabqewu i nestanku velikih civilizacija i imperija kakve su bile Grčka i Rim.Ostale su samo blede slike wihove nekada{we slave i mo}i. Slike koje danas u obliku monumentalnih spomenika {tr~e iz kamenitih pustiwa i upozoravaju na gre{ke koje se ne smeju ponoviti.
Savremeni ~ovek je, naro~ito od vremena tehnolo{ke revolucije, izmenio izgled ~itavih predela. Sastavni deo biosfere danas su veliki ili mawi gradovi, u kojima živi više od 50% ukupnog svetskog stanovništva (skoro četiri milijarde qudi). Pored toga, savremeni okvir `ivota i izgled biosfere danas karakteri{u ogromne povr{ine poqoprivrednog zemqi{ta, opusto{eni i erodirani tereni nastali prekomernim uni{tavawem {uma i sto~arewem, kao i razli~ita industrijska postrojewa i deponije. Izvorni oblici prirode odr`avaju se jo{ samo u okviru za{ti}enih podru~ja kao {to su rezervati i nacionalni parkovi, ili na nepristupa~nim mestima koja nisu pogodna za `ivot ~oveka. Zbog svega toga za{tita `ivotne sredine i prirode u celini danas se postavqa kao jedna od najva`nijih aktivnosti i obaveza savremenog ~oveka.
Do promena fizi~kih i hemijskih karakteristika `ivotne sredine dolazi zbog prekomernog zaga|ivawa vazduha, vode i zemqi{ta kao tri me|usobno povezane i neraskidive celine biosfere. Istovremeno, zaga|ivawe `ivotne sredine, po svojoj prirodi, mo`e biti hemijsko, fizi~ko, biolo{ko i radioaktivno.
Razlikama u gustini vazduha, vode i zemqi{ta odre|ene su i razmere posledica koje iz toga proizlaze (globalni, regionalni i lokalni nivo). Me|utim, to ne zna~i da vazduh, vodu i zemqi{te treba shvatiti kao nezavisne i odvojene delove `ivotne sredine. Naprotiv, svaka zaga|uju}a materija koja se emituje u vazduh pre ili kasnije dospe u vodu i zemqi{te, kao {to zaga|ewa iz vode dospevaju u zemqi{te, i obrnuto.
Zaga|ivawe vazduha nastaje kada se razli~iti prirodni gasovi (ugqen-dioksid, ugqen-monoksid, sumpor-dioksid, azotni oksidi, metan), kao i sitne ~estice ~a|i i pra{ine oslobode u atmosferu. Pri tom dolazi do promene prirodnog odnosa i koncentracije osnovnih komponenata vazduha. Ponekad ovi gasovi i ~estice dolaze u atmosferu prirodnim putem, na primer usled vulkanskih erupcija i prirodnih [irewe pustiwa
po`ara, ali mnogo ~e{}e oni dospevaju u atmosferu pod uticajem ~ovekovih aktivnosti, pre svega sagorevawem ugqa, nafte, prirodnog gasa i drveta. Da bi problemi bili ve}i, u atmosferu se ispu{taju i ogromne koli~ine ve{ta~ki sintetisanih za ga |uju}ih materija kao {to su fluoridi, ugqovodonici, ketoni, te{ki metali i sl. Saobra}aj, industrija i termoelektrane su glavni izvori zaga|ivawa vazduha. Smatra se da oko 60% ukupnog svetskog aerozaga|ewa poti~e od saobra}aja, odnosno od izduvnih gasova iz motora automobila, aviona i brodova.
Fenomen gradskog smoga
Vazduh je najzaga|eniji iznad velikih industrijskih gradova sa gustim saobra}ajem. ^estice ~a|i i pra{ine, sumpor-dioksida i azotnih oksida, u kombinaciji s maglom, formiraju klasi~an (londonski) smog, dok se u gradovima sa malom relativnom vla`no{}u vazduha, u prisustvu intenzivne Sun~eve radijacije, formira tzv. fotosmog (LA = tip „Los An|eles“)u kome ima ozona, vodonik-peroksida, azotnih oksida i drugih {tetnih jediwewa koja nastaju u seriji fotohemijskih reakcija. Primera radi, u Beogradu se tokom jeseni i zime ~esto formira klasi~an smog, dok se tokom vedrih, sun~anih letwih dana, bez vetra, formira fotosmog.
S obzirom na to da je vazduh najre|i deo `ivotne sredine, svako lokalno zaga|ivawe vrlo lako i brzo mo`e da poprimi regionalne, pa ~ak i globalne razmere i posledice. Dokaz za to su tragovi sagorevawa benzina iz automobila prona|eni u ve~itom ledu Antarktika. Poja~avawe ina~e prirodnog efekta staklene ba{te – koje kao posledicu ima promenu klime u smislu globalnog zagrevawa planete Zemqe i podizawe nivoa svetskog mora, uni{tavawe ozonskog omota~a i pojavu kiselih ki{a – direktna je posledica naglih promena fizi~kih i hemijskih karakteristika atmosfere na globalnom planu.
Podizawe nivoa svetskog mora
Naučnici su jedinstveni u oceni da je brzina topqewa leda na polovima, naročito na Arktiku, povećana globalnim zagrevawem. Ukoliko atmosfera nastavi da se istim tempom zagreva, nivo mora }e do kraja XXI veka biti povi{en u proseku za 1 m, a na nekim mestima i do dramati~nih 3 m. Niske morske obale i mnoga ostrva }e u tom slu~aju biti potopqeni, zajedno sa brojnim gradovima u priobaqu i obradivim poqima.
Zaga|ivawe vodapredstavqa jedan od najve}ih problema biosfere sa nesagledivim posledicama za `ivi svet i ~oveka. Voda je osnovni preduslov postojawa i funkcionisawa `ivota na Zemqi, ali i stani{te mnogih biqnih i `ivotiwskih vrsta. Ona je univerzalni rastvara~ koji dominira u gra|i svih `ivih bi}a, a tako|e i sredina u kojoj je nastao `ivot. Istovremeno, voda je ograni~en prirodni resurs. Sve kopnene vode planete Zemqe (povr{inske i podzemne) ~ine svega 0,5 – 1% ukupne svetske vode, na koju je uglavnom orijentisano ~itavo ~ove~anstvo (više od sedam milijardi qudi). Primera radi, kada bismo ukupnu vodu planete Zemqe smestili u bure od 100 l, sva kopnena voda (povr{inska i podzemna) stala bi u samo 2–3 ~a{e. U ledu Arktika i Antarktika „zarobqeno” je 2% svetske vode, dok se u svetskom moru nalazi ~ak 97%
Izliv otpadne industrijske vode
^ista voda – strate{ki resurs
Smrt zaga|enog vodenog ekosistema
„Odmor na vodi“ u ~vrstom komunalnom otpadu koji donosi reka
Smatra se da je voda zaga|ena kada, usled ~ovekovog delovawa, nastanu znatnije promene u wenom fizi~ko-hemijskom i biolo{kom sastavu.
Kopnene vode i svetsko more zagađuju se fizički (čvrst otpad, nafta, temperatura, buka, vibracije), hemijski (organske i neorganske materije, nafta, te{ki metali, pesticidi), biolo{ki (alohtone – strane vrste, patogeni mikroorganizmi, virusi) i radioaktivno (nuklearne probe, havarije podmornica, nuklearni otpad i sl.).
Re{avawe problema efikasne za{tite i racionalnog kori{}ewa kopnenih voda name}e se ve} du`e vreme kao jedan od najve}ih prioriteta savremenog ~oveka. Od toga zavisi i wegov opstanak kao organske vrste na planeti Zemqi. U protivnom, mnogi ozbiqni prognosti~ari i
Eutrofizacija – „cvetawe vode”Akumulaciono jezero Peru}ac na Drini, kod Bajine Ba{te
Ispra`wena akumulacija „Zaovine” na planini Tari
strate{ki analiti~ari sla`u se da }e nastupaju}e decenije XXI veka biti obele`ene ratovima koje }e qudi sve vi{e voditi radi kontrole nad velikim izvorima ~iste vode, a sve mawe radi dominacije nad resursima nafte i drugih fosilnih goriva.
Pod zaga|ivawem zemqi{ta podrazumevaju se promene fizi~kih, hemijskih i biolo{kih svojstava zemqi{ta, koje dovode do smawewa wegove plodnosti i sposobnosti za normalno odvijawe procesa razlagawa,a samim tim i kru`ewa materije u prirodi. Normalno funkcionisawe svakog kopnenog ekosistema zavisi od prirodnih karakteristika zemqi{ta. Zbog toga svaka promena u pogledu karakteristika zemqi{ta mo`e imati znatne posledice na ukupan sastav `ivog sveta i procese koji se odvijaju u ekosistemu.
Savremena poqoprivreda Monokultura suncokreta
Zemqi{te se, kao i voda, zaga|uje na razli~ite na~ine (fizi~ki, hemijski, biolo{ki i radioaktivno). Jedan od najve}ih izvora zaga|ivawa je savremena poqoprivreda (ekspanzivnog i ekstenzivnog tipa). Agroekosistemi danas obuhvataju ogromna prostranstva. Samo u na{oj zemqi zauzimaju preko 5 000 000 ha, {to predstavqa vi{e od 60% ukupne teritorije. Tolika povr{ina bila bi dovoqna da obezbedi hranu za mnogobrojnije stanovni{tvo nego {to je na{e. Poqoprivredna zemqi{ta se zaga|uju neposrednim hemijskim delovawem (pesticidima) radi suzbijawa korova i drugih {teto~ina, kao i prekomernom upotrebom ve{ta~kih |ubriva.
Oblici neposrednog hemijskog zaga|ivawa i fizi~kog uni{tavawa plodnog zemqi{ta su i brojne nepregledne deponije komunalnog i industrijskog otpada, rudnici sa povr{inskim kopom, kamenolomi, ve{ta~ka akumulaciona jezera koja potapaju zemqi{te, prekomerna i neadekvatna urbanizacija, se~a {uma koja dovodi do erozije plodnog zemqi{ta na ogromnim prostranstvima i sl.
Erozija zemqi{ta – globalni problem
Vodna erozija u brdsko-planinskim podru~jima i erozija vetrom (eolska) u ravni~arskim predelima mogu odneti velike koli~ine plodnog zemqi{ta za veoma kratko vreme, ostavqaju}i iza sebe kamenite goleti. U Americi je erozijom zahva}eno 60% teritorije i to je progla{eno za nacionalnu nesre}u. U Turskoj je erozijom zahva}eno 72% teritorije. Zabriwava ~iwenica da je erozija razli~itog intenziteta u Srbiji zahvatila ~ak 86% teritorije. Pri tome su „ekscesna”, ili vrlo jaka, zajedno s jakom i sredwom erozijom zabeležene na ukupno 28% teritorije. U brdsko-planinskim podru~jima centralne i ju`ne Srbije najizra`enija je vodna erozija, dok je u Vojvodini uglavnom prisutna eolska erozija.
1. Deponije pepela i šqake prekrivaju danas 1 800 hektara plodnog zemqišta u Srbiji
2. Kamenolomi, kao „otvorene rane" na povr{ini Zemqe
3. Deponija rudni~ke jalovine u Boru
4. Rudnik sa povr{inskim kopom
5. Deponija komunalnog otpada u Leskovcu
6. Kontejneri za sakupqawe komunalnog otpada u Vrbasu
7. Deponija komunalnog otpada u Subotici, stara oko 30 godinaudaqena je svega 50 m od veterinarske stanice, a 350 m od bolnice.
Kisele ki{e predstavqaju znatan indirektni izvor zaga|ivawa zemqi{ta. Ovaj globalni problem je, pored su{ewa mnogih {uma, doveo i do velikog zaga|ivawa zemqi{ta na ogromnim prostranstvima. Zemqi{te se posredno zaga|uje i preko vode. Naime, ukoliko se za zalivawe koristi zaga|ena voda, ili ukoliko zemqi{te poplavi zaga|ena reka, neminovno dolazi i do zaga|ivawa samog zemqi{ta.
Posledice zaga|ivawa zemqi{ta ne ose}aju samo ~lanovi kopnenih ekosistema. Mnogobrojne zaga|uju}e materije spirawem dolaze do podzemnih i povr{inskih voda, a preko wih i do mora. [tete od zaga|ivawa zemqi{ta imaju ne samo priroda, divqe vrste biqaka i `ivotiwe ve} i sam ~ovek koji dovodi do zaga|ivawa. Naime, gotovo sve zaga|uju}e materije, pre ili kasnije, preko lanaca ishrane ili preko povr{inskih i podzemnih voda – bunara, dospevaju i do ~oveka. Na taj na~in otrovi koje neodgovorno rasejavamo po prirodi na kraju zavr{avaju i na na{oj trpezi, u zaga|enoj hrani i vodi, prouzrokuju}i razli~ita oboqewa i preranu smrt.
Su{ewe {uma – jedna od najve}ih globalnih posledica zaga|ivawa vazduha, vode i zemqi{ta
I{~ezle vrste
Megaceros (xinovski jelen) Ptica dodo Moravski vodeni ora{ak
Promene sastava `ivog sveta uekosistemima i biosferi direktna su posledica promena fizi~kih i hemijskih uslova sredine nastalih delovawem savremenog ~oveka. Zaga|ivawem ili potpunim uni{tavawem razli~itih kopnenih i vodenih stani{ta ~ovek naglo mewa i oduzima `ivotni prostor drugim `ivim bi}ima. U nemogu}nosti da se tako brzo prilagode izmewenim `ivotnim uslovima, mnoge vrste i{~ezavaju ili se povla~e u podru~ja u kojima jo{ uvek postoje o~uvana stani{ta. S druge strane, vrste koje su uspele ili uspevaju da se prilagode izmewenim uslovima stani{ta i prisustvu ~oveka predstavqaju, po pravilu, wegove stalne, ali i ne`eqene pratioce (korovi, neki glodari, razli~ite vrste ptica, mnogi insekti i drugi beski~mewaci). Stvaraju}i, uglavnom nesvesno, pogodne uslove za wihov razvoj, savremeni ~ovek se ~esto suo~ava sa wihovim prenamno`avawem i razli~itim problemima
koji iz toga proizlaze. Jednom re~ju, ~ovek sve sna`nije uti~e na promenu prirodnog sastava i odnosa u biocenozama i ekosistemima, dovode}i, po pravilu, do wihovog siroma{ewa.
Jo{ od vremena prvih seoba ~ovek je sa sobom raznosio i razli~ite biqne i `ivotiwske vrste. Nekada je to radio svesno, ali u mnogim slu~ajevima i nesvesno. Na taj na~in on je, na posredan ili neposredan na~in, u velikoj meri doprinosio {irewu brojnih vrsta.
U novije vreme, sa intenzivirawem migracija qudi, problem alohtonih (stranih) biqnih i `ivotiwskih vrsta i wihov uticaj na ekolo{ke odnose u sredini u koju dospevaju zaokupqa sve ve}u pa`wu nau~nika.
Alohtone biqne i `ivotiwske vrste su, namerno ili slu~ajno, introdukovane (unete) vrste ~iji istorijski razvoj, za razliku od autohtonih vrsta, nije vezan za teritoriju na koju su unete. Daqa sudbina tih biqaka i `ivotiwa i wihov uticaj na ekolo{ke odnose umnogome zavise od toga da li su one unete voqno ili nevoqno (slu~ajno).
^ovek je vremenom kod nekih biqaka i `ivotiwa uo~io karakteristike koje je smatrao povoqnim, pa se potrudio da ih domestifikuje, a zatim i pro{iri wihove areale. On je svesno vr{io introdukciju tih vrsta, tako da su one danas {iroko rasprostrawene i smatraju se, uglavnom, kosmopolitskim. Kod kultivisanih biqaka ~ovek favorizuje karakteristike koje smatra pogodnim. Me|utim, sticawem osobina koje su po`eqne za ~oveka ove biqne vrste gube osobine svojih divqih predaka koje su im omogu}avale samostalan opstanak u prirodi, pa one nisu vi{e sposobne da se odr`e bez pomo}i ~oveka. Ipak, u svakoj populaciji kultivisanih biqaka javi se odre|en broj jedinki koje su zadr`ale karakteristike svojih divqih predaka. To je najzna~ajnije kada je u pitawu zadr`avawe prirodnih na~ina rasejavawa semena jer bez te osobine biqka nema {ansu da se spontano „naseli’’ u sredini izvan kontrolisanih agroekosistema.
Pored voqne i kontrolisane introdukcije biqaka koje ~ovek smatra korisnim, ~esti su slu~ajevi nenamernog uno{ewa razli~itih biqnih vrsta. One veoma uporno i uspe{no prate ~oveka u wegovim migracijama, ali su u najve}em broju slu~ajeva to ne`eqeni pratioci. Na~ini na koje strane biqke dospevaju u novu sredinu su razli~iti. Nekada je to zajedno sa semenskim materijalom koji se uvozi (npr. sa semenom `itarica ~esto se uvezu i semena korova koji su weni pratioci (– recimo, ambrozija je uvezena sa semenom krompira, crvene deteline i lucerke), nekada putem transportnih sredstava (na to~kovima kamiona, automobila i drugim delovima prevoznih sredstava), a ponekad su prenosioci i razli~ite vrste `ivotiwa koje u svojim migracijama mogu da prevale rastojawa ~ak i izme|u kontinenata. Brojni su oblici adaptacija semena za preno{ewe zoohornim putem. To mogu biti kukice, izra{taji
ili razne lepqive materije koje semenu omogu}avaju da se zaka~i za krzno ili dlaku `ivotiwe. U slu~aju endozoohornog preno{ewa to su uglavnom nesvarqiva semena sa veoma so~nim omota~em koji ih ~ini privla~nim za `ivotiwe i obezbe|uje da seme bude progutano, ali ne i svareno. Me|utim, jedan od najefikasnijih prenosilaca je ipak savremeni ~ovek. On mo`e preneti semena biqaka na razli~itim delovima svoje ode}e i prtqaga, prelaze}i interkontinentalne razdaqine za veoma kratko vreme.
Nenamerno unete vrste koje uspeju da se pro{ire na novoj teritoriji uglavnom su nepo`eqne za ~oveka i sa antropocentri~ne ta~ke gledi{ta smatraju se korovima. Glavni razlog i preduslov wihove uspe{ne introdukcije predstavqa uni{tena ili na bilo koji na~in o{te}ena autohtona vegetacija, ~ime su stvorene slobodne ekolo{ke ni{e koje one mogu naseliti. Me|utim, u situaciji kada postoji dobro razvijena autohtona vegetacija, alohtone vrste imaju malu {ansu u kompeticiji sa autohtonim vrstama.
Problemi i posledice introdukcije alohtonih vrsta nisu u ranijem periodu bili predmet ozbiqnije pa`we i istra`ivawa. Me|utim, kada su korovske vrste postale ozbiqna pretwa agroekosistemima, ustanovqen je termin biolo{ko zaga|ivawe
Uno{ewe stranih biqnih i `ivotiwskih vrsta u po~etku pove}ava biolo{ku raznovrsnost nekog podru~ja, ali posle odre|enog vremena, ukoliko se alohtone vrste poka`u kao kompetitivno ja~e, dolazi do i{~ezavawa autohtonih vrsta, a samim tim i do promene ishodnog biodiverziteta. Ovo mo`e da bude naro~ito opasno u ekosistemima koji su teritorijalno izolovani, kakva su, na primer, ostrva ili vodeni ekosistemi. Danas, kada se sve ve}a pa`wa poklawa o~uvawu biodiverziteta, naro~ito autohtonog, slu~ajno introdukovane vrste se uglavnom smatraju nepo`eqnim i {tetnim. Zbog toga se primewuju intenzivne mere kontrole mogu}ih puteva uno{ewa alohtonih biqnih i `ivotiwskih vrsta, kao i spre~avawa wihovog {irewa.
Ovaj proces dovodi se u vezu s po~etkom sna`nijeg uticaja ~ovekovih neposrednih predaka na prirodu, odnosno sa periodom kada se u evoluciji pojavquje vrsta Homo sapiens sapiens,koja prelazi na stacionaran na~in `ivota i po~iwe ozbiqnije da mewa prirodni okvir `ivota. Ve}ina dana{wih kultivisanih biqaka i `ivotiwa pripitomqena je u periodu izme|u 11000 i 2 500 godina pre nove ere. Taj proces se odvijao uporedo sa razvojem poqoprivrede. Uni{tavawem prirodne vegetacije, pre svega {umske, ~ovek sve vi{e osloba|a obradivo zemqi{te za gajewe pripitomqenih biqaka (ratarskih, povrtarskih i vo}arskih kultura). Domestifikovane `ivotiwe koristi za ishranu, ali i kao pomo} pri obradi zemqi{ta. Vremenom, ~ovek sve vi{e razvija svoja znawa i tehnologiju poqoprivredne proizvodwe radi postizawa ve}eg prinosa (nove sorte biqaka, nove rase `ivotiwa, boqa agrotehni~ka obrada zemqi{ta). Me|utim, posledice koje ekspanzivna poqoprivreda ostavqa na `ivotnu sredinu su ogromne. Vi{e od polovine ukupnog {umskog fonda Zemqe ve} je uni{teno i pretvoreno u oranice, a zemqi{te je u velikoj meri erodirano, osiroma{eno u pogledu plodnosti i zaga|eno pesticidima.
Procesi urbanizacije i industrijalizacije spadaju me|u najsna`nije vidove uticaja savremenog ~oveka na prirodu. U velikim gradovima – megalopolisima, sredwim i mawim
gradovima danas `ivi više od 50% čovečanstva, a to je skoro četiri milijarde qudi.Za mnoge od wih gradska (urbana) sredina predstavqa jedini ostvareni okvir `ivota, pa se ~esto ka`e da je gradski ~ovek u velikoj meri otu|en od prirode.
Milionski gradovi – megalopolisi
U svetu danas ima 12 gradova sa preko 10 000 000 stanovnika, 33 grada sa preko 5 000 000 i 281 grad sa vi{e od milion stanovnika. Prostor izme|u gradova se, naro~ito u nekim gusto naseqenim zemqama, kao {to je Japan, sve vi{e smawuje.
U gradovima, kao specifi~nim ekolo{kim sistemima, i industrijskim zonama, koje se naj~e{}e nalaze u wihovom neposrednom okru`ewu, javqaju se gotovo svi oblici zaga|ivawa `ivotne sredine (vazduha, vode, zemqi{ta). Kao „paraziti biosfere“, gradovi u potpunosti zavise od okolnih prirodnih ekosistema ili od agroekosistema iz kojih uzimaju velike koli~ine hrane, vode i energije za zadovoqavawe svojih ogromnih potro{a~kih potreba. Istovremeno, toj istoj `ivotnoj sredini gradovi „vra}aju“ uglavnom samo velike koli~ine otpada, zaga|ene vode i {tetnih materija u vazduhu koje ona nije u stawu da razlo`i i ukqu~i u proces kru`ewa materije. Zbog toga se pred urbanu ekologiju i ekologiju ~oveka, kao savremene ekolo{ke discipline, postavqaju mnoga pitawa, na primer: ho}e li se, ili boqe re}i, kada }e se ~itavo ~ove~anstvo preseliti u grad kao magi~no carstvo asfalta, betona, ~elika i stakla,kakve su perspektive opstanka urbanog ~oveka, mo`e li se, i na koji na~in, unaprediti kvalitet `ivota u gradu, kako je re{eno odlagawe otpada u velikim gradovima itd. Pitawa je bezbroj, a na wih nije lako jednostavno i kratko odgovoriti.
Ovi geneti~ki i zdravstveni efekti neposredno zavise od vrste zaga|uju}e materije, stepena wene toksi~nosti, vremena izlo`enosti izvoru zaga|ivawa, kumulativne sposobnosti zaga|uju}e materije u tkivima, kao i od op{teg zdravstvenog stawa qudi.
Milionski grad – megalopolis Nuklearna eksplozija
Dejstvo zaga|uju}ih materija na organizam ~oveka jo{ uvek nije dovoqno ispitano. Eksperimenti na `ivotiwama pokazali su da je ono veoma {tetno, ~esto i smrtonosno. Pored toga, pojedina~ni negativni efekti zaga|uju}ih materija se poja~avaju kada vi{e wih zajedni~ki deluje. Po svojim geneti~kim i somatskim efektima i posledicama najopasnije je radioaktivno zra~ewe. Radioaktivnost je prirodan i spontan proces tokom kojeg nestabilni atomi nekog elementa emituju ili zra~e vi{ak energije u obliku ~estica ili talasa. Takve emisije nazivaju se jonizuju}e zra~ewe. Ono sadr`i veliku koli~inu energije i kada do|e u interakciju s nekim materijalom, uklawa elektrone iz wegovih atoma. To je razlog {to je jonizuju}e zra~ewe opasno po zdravqe qudi i svih `ivih bi}a.
Radioaktivno zra~ewe ima sna`no negativno dejstvo na geneti~ki materijal, kumulativnog je (sabiraju}eg) karaktera, a u ve}im dozama izaziva radijacionu bolest i smrt organizma. Geneti~ke promene nastale dejstvom radioaktivnih, ali i drugih zaga|uju}ih materija nasle|uju se i tako prenose na budu}e generacije. Primera radi, posledice radioaktivnog zra~ewa posle nuklearnih udara na japanske gradove Hiro{imu i Nagasaki krajem Drugog svetskog rata ispoqavale su se u razli~itim vidovima teratogenih i kancerogenih promena i visokoj stopi smrtnosti lokalnog stanovni{tva godinama posle eksplozija.
Izvori radioaktivnog zra~ewa mogu biti prirodni i ve{ta~ki. Prirodna radioaktivnost u biosferi mo`e biti kosmi~kog ili zemaqskog porekla i ne predstavqa ozbiqniji izvor zaga|ewa. Nasuprot tome, ve{ta~ka radioaktivnost, koja poti~e iz mirnodopskih i vojnih izvora, predstavqa veliku, ne samo realnu ve} i potencijalnu opasnost za ukupan `ivi svet na planeti Zemqi.
Najve}i mirnodopski izvori radioaktivnog zra~ewa su elektrane na nuklearni pogon. Mada je, teorijski posmatrano, re~ o visokoj, skupoj i „relativno ~istoj tehnologiji”, nuklearne elektrane su, ipak, velika potencijalna opasnost, sa nesagledivim posledicama, zbog mogu}ih havarija i problema sa odlagawem radioaktivnog otpada. Veliki mirnodopski izvori zra~ewa su i industrija, poqoprivreda i nauka (naro~ito medicina), koje primewuju radioizotope u okviru svojih delatnosti.
Vojni izvori radioaktivnog zaga|ivawa su brojniji i mnogo opasniji. To su, pre svega, probe nuklearnog oru`ja, koje su podjednako opasne bilo da se izvode u atmosferi, bilo na povr{ini Zemqe, bilo u dubinama okeana. Nuklearne probe su u novije vreme maksimalno ograni~ene me|unarodnim sporazumima. Ipak, skladi{tewe, transport i manipulacija nuklearnim oru`jem, kao i ~este havarije podmornica na nuklearni pogon, predstavqaju stalnu pretwu i opasnost zbog nepredvidivih situacija sa nesagledivim posledicama.
Problem odlagawa i sigurnog deponovawa velikih koli~ina radioaktivnog otpada iz sve brojnijih nuklearnih elektrana, istra`iva~kih i medicinskih instituta jo{ uvek nije re{en na zadovoqavaju}i na~in, tako da predstavqa veliku pretwu i opasnost za zdravqe qudi i ukupan `ivi svet na planeti Zemqi. U dana{we vreme ovaj otpad se pakuje u odgovaraju}e kontejnere u kojima je izolovan, a zatim se ti kontejneri odla`u u napu{tene rudnike, u specijalno napravqena betonska skladi{ta na povr{ini ili u dubini Zemqine kore, ili u okeanske dubine. Me|utim, veoma je va`no da mesta za odlagawe radioaktivnog otpada budu u seizmi~ki stabilnim delovima litosfere kako bi se opasnost od izlivawa otpada iz kontejnera svela na najmawu meru.
Geneti~ke promene koje se manifestuju biohemijskim, fiziolo{kim i morfolo{kim anomalijama kod qudi sve vi{e se povezuju sa {tetnim delovawem razli~itih zaga|uju}ih materija. Ina~e, tolerantnost `ivih bi}a prema zaga|uju}im materijama nije ista. Eksperimentalno je utvr|eno da {korpije, neke vrste rakova i insekata, a naro~ito bakterije, mogu da podnesu nekoliko stotina puta ve}e doze radijacije nego ~ovek. Generalno govore}i, organizmi na vi{em evolutivnom nivou mnogo su osetqiviji na zra~ewe od organizama ni`e telesne organizacije. Pored toga, radioaktivno zra~ewe ne deluje podjednako na sve organe u organizmu. Najosetqiviji su reproduktivni organi, limfno i ko{tano tkivo, kao i kardiovaskularni sistem. Negativne zdravstvene i geneti~ke efekte imaju i razli~ite hemijske supstance, na primer te{ki metali (`iva, olovo, cink, bakar) i wihova jediwewa, kao i mnoga druga neorganska i organska jediwewa koja se sve vi{e proizvode i emituju u `ivotnu sredinu. Sve ve}i broj oboqewa disajnih organa kod gradske dece, kao {to su hroni~ni bronhitis i bronhijalna astma, dovodi se u vezu s velikom zaga|eno{}u vazduha. Sli~na je situacija i s razli~itim alergijama i op{tim smawewem imuniteta.
Buka je specifi~an vid fizi~kog zaga|ivawa. Kao zvu~no talasno kretawe, ostavqa {tetne posledice na slu{ni aparat, psihu i zdravqe qudi. To se, pre svega, odnosi na ve{ta~ke izvore buke, koji su uglavnom karakteristi~ni za gradska i industrijska naseqa. U gradskoj sredini postoje mnogobrojni izvori buke: saobra}aj, tehni~ki ure|aji u industriji, ventilacioni, gasnoturbinski, kompresorski ure|aji i sl. Buka se, s obzirom na raznovrsnost izvora, razlikuje prema poreklu, intenzitetu i trajawu. Prirodni izvori buke su grmqavina, morski talasi, tok reka, {um li{}a, ogla{avawe ptica i drugih `ivotiwa.
Dugotrajno izlagawe ve{ta~kim izvorima buke izaziva poreme}aj slu{nog aparata, nagluvost, ~ak i potpunu gluvo}u. Na psihu qudi buka deluje tako {to izaziva uznemirenost i agresivnost, a dokazani su i weni negativni efekti na kardiovaskularni sistem (usporava ritam rada srca i povi{ava krvni pritisak). Ona, tako|e, usporava peristaltiku `eluca, smawuje sekreciju pquva~nih `lezda, negativno deluje na {titnu i nadbubre`nu `lezdu, mewa elektri~nu aktivnost mozga, smawuje seksualnu aktivnost. Uve}ini evropskih gradova neprihvatqivim nivoima buke od preko 65dB (decibela) izlo`eno je od 10 do 20% urbanog stanovni{tva. Zaga|ivawe bukom u gradskoj sredini je najopasnije tokom no}i. ^esto bu|ewe zbog buke tokom no}i sni`ava efektivnost odmora i pove}ava rizik od obolevawa. Utvr|eno je da no}na buka od 55dB izaziva fiziolo{ke posledice kao buka od 65dB tokom dana.
Buka i zdravqe
Smatra se da buka ~ini 80% uzroka migrene i 52% rastrojstva pam}ewa. Svaki drugi ~ovek i svaka tre}a `ena u Engleskoj imaju posledice hroni~ne nervoze izazvane bukom. Uzrok bolesti svakog petog pacijenta u francuskim psihijatrijskim bolnicama je buka. U bu~nim kvartovima Wujorka prime}eno je zabriwavaju}e zaostajawe dece u rastu i razvoju. Buka je, prema nekim mi{qewima, u 30% slu~ajeva odgovorna za skra}ivawe trajawa `ivota za 8 do 12 godina, kao i za sklonost ka nasiqu, ubistvu ili samoubistvu.
Primetno je da intenzitet buke stalno raste u celom svetu. O~ekuje se da }e u narednih nekoliko godina prose~ni nivo buke u ameri~kim gradovima, i pored za{titnih mera, biti ve}i za 50% u odnosu na 1970. godinu.
S obzirom na to da je saobra}aj ozna~en kao glavni izvor buke u gradovima, i aktivnosti na za{titi od buke usmerene su u tom pravcu. Radi se, pre svega, na usavr{avawu saobra}ajnih sredstava i samih saobra}ajnica kako bi se emisija buke smawila. U mnogim metropolama su izgra|ene kru`ne saobra}ajnice i obilaznice za tranzitni saobra}aj. Bu~na vozila se zamewuju mawe bu~nim, a u mnogim gradovima je u centralnim zonama zabrawen saobra}aj i uvedene su pe{a~ke zone. Razra|uju se projekti uvo|ewa pokretnih traka i be{umnih elektromobila, {to bi znatno doprinelo i smawewu zaga|enosti vazduha. Prometne saobra}ajnice se obavezno odvajaju od stambene zone za{titnim zelenim {umskim pojasevima koji u velikoj meri smawuju intenzitet buke. Mnoga industrijska postrojewa, podstanice, saobra}ajnice, hladwa~e, sportske hale, pijace, autobuske baze, tramvajski depoi i sl. sve vi{e se grade ispod povr{ine zemqe a to }e, pored umawewa gradske buke, u{tedeti i stotine hektara gradskog zemqi{ta.
Ne~ujni pratilac buke, veoma opasan po zdravqe qudi, jesu vibracije. One naro~ito {tetno deluju na nervni sistem i ~ula.
Osnovni izvor zaga|ewa vibracijama su razni tehni~ki ure|aji udarnog dejstva (~eki}i, prese, vibracioni ure|aji i sl.), jaka energetska postrojewa (pumpe, kompresori, motori),
kao i neka saobra}ajna sredstva (`eleznica, metro, tramvaj). Vibracije se, u svakom slu~aju, rasprostiru po tlu i dospevaju do temeqa stambenih i poslovnih zgrada, odakle se preko gra|evinske konstrukcije prenose do zidova. Prilikom preno{ewa vibracija kroz tlo i temeqe postoji opasnost od neravnomernog slegawa temeqa i zemqi{ta, {to mo`e dovesti do pucawa zgrada, naro~ito na tlu koje je zasi}eno vlagom. Dozvoqeni nivo vibracija u stambenim zgradama se reguli{e posebnim normama. One su obavezne za sve upravne, projektantske i gra|evinske organizacije, kao i za organizacije koje su potencijalni izvori vibracija (saobra}ajne, gra|evinske i dr.).
Sa porastom zaga|ivawa `ivotne sredine, {to ugro`ava zdravqe qudi, posledwih decenija sve vi{e i ozbiqnije organizuju se razli~iti sistemi pra}ewa i kontrole stawa zaga|enosti vazduha, vode, zemqi{ta i hrane. Sistem pra}ewa stawa `ivotne sredine naziva se monitoring. On mora da bude kontinuiran, s ciqem da pravovremeno registruje promene u okru`ewu, realno proceni i upozori na mogu}u opasnost. Monitoring mo`e biti fizi~ko-hemijski i biolo{ki, pri ~emu se oni ne iskqu~uju, ve} se dopuwavaju. Hemijskim monitoringom se pomo}u razli~itih instrumenata i laboratorijskih postupaka precizno analiziraju trenutne kvalitativne i kvantitativne karakteristike i promene u uzorcima vazduha, vode, zemqi{ta ili hrane. Biolo{ki monitoring podrazumeva kori{}ewe `ivih bi}a kao indikatora stepena zaga|enosti `ivotne sredine. Su{tina biolo{kog monitoringa zasniva se na ~iwenici da prisustvo, odsustvo i pona{awe `ivih bi}a u `ivotnoj sredini ukazuju na dugotrajno (kumulativno) delovawe zaga|uju}ih materija.To zna~i da se bez preciznih merewa, samo na osnovu uvida u sastav flore i faune, mo`e ta~no i pouzdano utvrditi stawe zaga|enosti ekosistema. Primera radi, li{ajevi i mahovine su izvanredni bioindikatori zaga|enosti vazduha u gradovima, dok su mnoge alge i fauna koja `ivi na dnu vodenih ekosistema dobri indikatori zaga|enosti tih sistema.
@bunasti li{aj (Usnea barbata) –bioindikator ~istog vazduha
Poto~na pastrmka
alga fragilarija
Bioindikatori ~istih voda
osnove prostornog planirawa i ure|ewa
Uva`avawe ekolo{kih principa i zakonitosti funkcionisawa i stabilnosti ekosistema i biosfere predstavqa, prilikom ~ovekovih intervencija u prirodi, osnovni preduslov za
pravilno ure|ewe i odr`ivo kori{}ewe `ivotnog prostora u skladu sa zahtevima i potrebama savremenog ~oveka. Budu}i da su ekolo{ke prilike na Zemqi veoma razli~ite, ne postoji univerzalno re{ewe koje bi se moglo primeniti za ure|ewe bilo kojeg prostora u bilo kom delu biosfere.
moderne arhitekture i zelenila u prostornom planirawu
Prostor u celini predstavqa osnovu sveukupnog razvoja. U wemu se reflektuju sve promene – sociolo{ke, demografske, ekonomske, te hnolo{ke i dr. Qudi su od pamtiveka ratovali i jo{ uvek ratuju radi osvajawa prostora i prirodnih resursa. Zbog brze urbanizacije, industrijske revolucije, naglog razvoja saobra}ajne infrastrukture, kao i enormnog po ve }a wa prostora koji zauzima poqoprivredno zamqi{te, do{lo je do velikog raskoraka izme|u prirodne i izgra|ene sredine, {to preti da ugrozi opstanak samog ~oveka. Otuda i sve ve}a potreba za racionalnim – odr`ivim planirawem i ure|ewem prostora.
Osnovni preduslov uspe{nog planirawa i ure|ewa prostora jeste pravilno (ekolo{ko) shvatawe prostora kao prirodnog resursa sa ve} postoje}im ekolo{kim sadr`ajima, prednostima i ograni~ewima, a ne kao „praznog prostora“ koji samo treba urediti po `eqi ~oveka. Zbog toga je u izradi i dono{ewu prostornih planova nekog podru~ja, pored urbanista i arhitekata, neophodno u~e{}e biologa – ekologa, geografa, hidrologa, geologa, ekonomista, tehnologa, pravnika, sociologa, lekara, psihologa i drugih eksperata.
Svi zahvati vezani za ure|ewe i izgradwu nekog prostora treba da budu prethodno dobro pripremqeni. Moraju se dugoro~no predvideti sve mogu}nosti i eventualne opasnosti od poreme}aja u razli~itim ekolo{kim sistemima. Po{to se obavi detaqna ekolo{ka analiza podru~ja (reqef, geolo{ka podloga, seizmi~nost, klima, hidrolo{ke karakteristike, tipovi zemqi{ta, ekosistemi i sl.), prostornim planom se predvi|aju: razme{taj, struktura i veli~ina industrijskih, stambenih i drugih objekata, razme{taj i kapacitet infrastrukturnih sistema (saobra}aj, vodosnabdevawe, kanalizacija, energetika, deponije, zelene povr{ine), za{tita poqoprivrednog zemqi{ta i dr. Svi planovi razvoja i ure|ewa prostora –od op{tine, grada i regiona, do dr`ave – moraju da budu me|usobno usagla{eni i vremenski sinhronizovani.
Revitalizacija i rekultivacija ekosistema i predela name}u se kao prioritetan zadatak savremenog ~oveka. Me|utim, obnova naru{enih kopnenih ekosistema (pre svega {umskih) veoma je te{ka, slo`ena, dugotrajna i skupa. ^esto je i nemogu}a ukoliko degradacioni procesi „odmaknu“ suvi{e daleko (totalna erozija zemqi{ta – do mati~ne stene). Tada govorimo o potrebi revitalizacije, koja podrazumeva „vra}awe `ivota“ na biolo{ki prazna stani{ta.
Rekultivacija dolazi tek kasnije (preko serije razvojnih stadijuma) i podrazumeva vra}awe ekosistema na po~etno stawe. Revitalizacija i rekultivacija odvijaju se prirodno, spontano ({to podrazumeva dug vremenski period), ali mogu da budu potpomognute i ubrzane delovawem ~oveka.
Pepeli{ta i jalovi{ta oko termoelektrana i povr{inskih rudnika ugqa, kao i deponije komunalnog otpada, predstavqaju dobar primer za ilustraciju potrebe revitalizacije i rekultivacije. Naime, fizi~ko uni{tavawe zemqi{ta najdrasti~nije se ispoqava na povr{inskim kopovima, gde se okolno plodno zemqi{te prekriva i zatrpava ogromnim koli~inama jalovine nastale u procesu eksploatacije razli~itih ruda i ugqa, kao i pepela koji nastaje sagorevawem ugqa u termoelektranama. Procewuje se da se samo na taj na~in u svetu iskopa, premesti i nepovratno uni{ti preko ~etrdeset miliona tona plodnog zemqi{nog materijala godi{we. Pored toga, problemi deponovawa komunalnog otpada veoma su izra`eni kako u svetu tako i u gotovo svim gradovima Srbije. Procena je da se na preko 170 zvani~nih deponija – smetli{ta u Srbiji, kao i na bezbroj divqih deponija odlo`i oko tri miliona i petsto hiqada kubnih metara komunalnog otpada godi{we.
Da bi se gubitak plodnih povr{ina smawio i naru{eni zemqi{ni fond po mogu}nosti popravio, pristupa se rekultivaciji odlagali{ta jalovine, pepela i komunalnog otpada. Novoformirane i stare deponijske povr{ine se odre|enim agrotehni~kim i agrohemijskim melioracijama, kao i biolo{kom rekultivacijom prevode u „plodno zemqi{te” odre|enog stepena i odre|ene namene. U ve}ini zemaqa Evrope primewuje se kombinovana agrotehni~ko-agrobiolo{ka rekultivacija.
Najboqi i najprihvatqiviji na~in sanacije i ure|ewa deponija koje su prestale s radom, ili kojima predstoji hitno zatvarawe, jeste tzv. biolo{ko ure|ewe i rekultivacija, {to podrazumeva niz postupaka i mera s ciqem da se formiraju odgovaraju}e zelene povr{ine.
O~uvawe i za{tita biolo{ke raznovrsnosti (biodiverziteta), pored o~uvawa klime, najva`niji je zadatak u globalnoj za{titi prirode i `ivotne sredine na planeti Zemqi. Ovaj strate{ki zadatak za{tite prirode na globalnom nivou potvr|en je 1992. godine u Rio de @aneiru (Brazil), kada su {efovi dr`ava ili vlada 168 zemaqa sveta, me|u kojima je bila i na{a, potpisali ~uvenu Riodeklaraciju.
Kawon reke Tare u Crnoj Gori – za{ti}eni rezervat biosfere i Svetska prirodna ba{tina
Zabrinutost ~ove~anstva zbog sve ve}eg zaga|ivawa atmosfere koje dovodi do naglih poreme}aja klime na na{oj planeti (efekat staklene ba{te, ozonske rupe, kisele ki{e), kao i brzina ugro`avawa i i{~ezavawa biqnih i `ivotiwskih vrsta – nisu bez osnova. Naime, prema zvani~nim procenama svetskih organizacija za za{titu prirode, 60 000 biqnih vrsta (vi{e od ~etvrtine ukupne svetske flore) ve} je dramati~no ugro`eno, ili }e nestati u slede}ih nekoliko decenija, ukoliko se istim tempom nastavi sa populacionim rastom ~ove~anstva, destruktivnim ekonomskim razvojem, uni{tavawem {uma i drugih stani{ta i ekspanzijom poqoprivrede. Istovremeno, samo za posledwih 400 godina iščezlo je više od 600 vrsta životiwa, od čega 86 vrsta sisara (tasmanijski vuk, sabqasti tigar itd.), 104 vrste ptica (dodo, moa, velika worka, golub selac itd.), 20 vrsta gmizavaca, 5 vrsta vodozemaca, 80 vrsta riba, 72 vrste insekata, 206 vrsta puževa i pripadnika drugih grupa, kao i između 400 i 900 vrsta biqaka. Isto tako, iz prirodnih staništa iščezle su još najmawe 4 vrste sisara (divqi kow Prževalskog, Per Davidov jelen, arabijski oriks, crnonogi tvor), 4 vrste ptica (sjajnocrni fazan itd.), 1 vrsta gmizavaca (crna slatkovodna korwača) i vodozemaca (Tanzanijska patuqasta žaba), 11 vrsta riba i 9 vrsta mekušaca. Wihovi malobrojni primerci opstaju još samo u zoološkim vrtovima i drugim veštačkim pribežištima. Razli~ite procene ugro`enosti i brzine i{~ezavawa organskih vrsta dobijaju svakim danom sve dramati~nije razmere – od 3 vrste na dan, preko 3 vrste na sat, sve do najpesimisti~nijih procena od 100 vrsta na dan samo u zoni tropskih ki{nih {uma. Pomenute katastrofi~ne procene o brzini i{~ezavawa organskih vrsta nisu bez osnova, pogotovo ako se ima u vidu ~iwenica da je ~ovek do danas uni{tio vi{e od polovine ukupnog {umskog fonda na Zemqi, da se svakog minuta pose~e 57 ha trop-
IUCN ‡ Me|unarodna unija za za{titu prirode.‡ (World Conservation Union) je organizacija koja poma`e dru{tvima {irom sveta da {tite prirodu i obezbede ekolo{ki odr`ivo i ravnomerno kori{}ewe prirodnih resursa. To je asocijacija preko 900 vladinih i nevladinih ~lanica iz 137 zemaqa sveta. Sedi{te organizacije je u Glandu ([vajcarska).
skih ki{nih {uma, kao i da svetsko more ve} du`e vreme predstavqa najve}u deponiju savremenog ~oveka, mada i wegovu najve}u {ansu i izazov. Jednom re~ju, nesvesno ili svesno, ~ovek sve vi{e „se~e tanku zelenu granu” od koje zavisi wegov opstanak. Shvativ{i to, savremeni ~ovek se posledwih decenija sve vi{e okre}e za{titi divqih biqnih i `ivotiwskih vrsta i wihovih stani{ta, odnosno ekosistema, svestan da samo na taj na~in mo`e osigurati i sopstvenu budu}nost.
Sveobuhvatna za{tita ugro`enih biqnih i `ivotiwskih vrsta i ekosistema izuzetno je slo`en i odgovoran posao. Sastoji se od ~itavog niza metoda i postupaka koji zalaze u oblast nauke, zakonodavstva, kao i primewenih biolo{kih disciplina – {umarstva, poqoprivrede, hortikulture, veterine, farmacije i sl.
Yinovski panda je jedna od najugro`enijih `ivotiwa u svetu. On je postao svetski simbol ugro`enih vrsta. Lik pande nalazi se i na amblemu Svetskog fonda za za{titu prirode ‡ WWF (World Wild Fund).
Sve te metode i postupci mogu se grupisati u tri osnovne celine. Prvoj pripadaju metode za utvr|ivawe nau~nih osnova za{tite ugro`enih vrsta, druga podrazumeva postupke formalno-pravne za{tite, dok tre}a objediwuje aktivnosti koje se sprovode u praksi. Ova tre}a celina obuhvata sve aktivne metode za{tite, i to: in situ za{tite, koja podrazumeva o~uvawe izvornih ekosistema, odnosno o~uvawe, odr`avawe i oporavak populacija pojedinih vrsta na wihovim prirodnim stani{tima; reintrodukcije,koja predstavqa proces ve{ta~kog vra}awa biqnih i `ivotiwskih vrsta na prostor sa kojeg su i{~ezle; introdukcije,koja predstavqa poku{aj da se radi o~uvawa, vrsta ve{ta~ki naseli na prostor u kojem ranije nije `ivela; ex situ za{tite,koja podrazumeva o~uvawe vrsta van wihovih prirodnih stani{ta; edukacije i prezentovawa dosada{wih saznawa i rezultata u oblasti za{tite biolo{ke raznovrsnosti, odnosno objavqivawe prigodnih publikacija i postera, snimawe televizijskih emisija, CD-a, organizovawe popularnih predavawa i izlo`bi, {to predstavqa specifi~an vid aktivnosti na poqu za{tite ugro`enog biqnog i `ivotiwskog sveta.
Prvi korak u za{titi ugro`enih vrsta i ekosistema predstavqa administrativno-pravna za{tita, koja podrazumeva dono{ewe razli~itih zakona, uredaba, deklaracija, konvencija, rezolucija i strategija na nacionalnom ili me|unarodnom nivou. Na osnovu toga se razli-
Prema pravilniku o proglašewu i zaštiti strogo zaštićenih divqih vrsta biqaka, životiwa i gqiva, status strogo zaštićenih vrsta u Srbiji ima 1.746 vrsta, a status zaštićenih imaju 822 vrste.One se ne smeju sakupqati, loviti, uznemiravati, niti se smeju uništavati wihova staništa. Za staraoce tih vrsta određen je Zavod za zaštitu prirode Srbije.
Uredba o kontroli korišćewa i prometa divqe flore i faune predstavqa veoma značajan pravni dokument donet zbog prekomerne i nekontrolisane eksploatacije biqaka, životiwa i gqiva iz prirode. Uredbom su propisane zakonske mere sakupqawa, korišćewa i prometa za ukupno 179 vrsta koje su ugrožene ili mogu da postanu ugrožene nekontrolisanim korišćewem (lekovito biqe, šumski plodovi, jestive gqive, puževi, žabe i sl.). Uredbom su takođe određene dozvoqene količine, a propisani su i vreme i područje sakupqawa. Dozvole za sakupqawe izdaje Ministarstvo za životnu sredinu , dok se sredstva u visini od 10% od ukupne tržišne vrednosti usmeravaju u poseban Ekološki fond Buxeta Republike Srbije i koriste za finansirawe novih programa zaštite prirode.
~itim vrstama i podru~jima, u zavisnosti od stepena ugro`enosti, dodequje odgovaraju}i nivo pravne za{tite.
Radi uspe{nog o~uvawa ugro`enih vrsta i ekosistema neophodno je uskla|ivawe na{ih zakonskih propisa sa me|unarodnim konvencijama i deklaracijama iz ove oblasti, od kojih se kao najzna~ajnije mogu izdvojiti:
– Deklaracija o ~ovekovoj sredini, doneta na Prvoj konferenciji Ujediwenih nacija o ~ovekovoj sredini u Stokholmu 1972. godine. U woj je istaknuta neophodnost o~uvawa vode, vazduha, zemqi{ta, flore, faune i reprezentativnih ekosistema za dobrobit sada{wih i budu}ih generacija;
– Konvencija o o~uvawu biodiverziteta, doneta u Rio de @aneiru 1992. godine, u kojoj se nagla{ava zna~aj o~uvawa biolo{ke raznovrsnosti u planetarnim razmerama;
– Konvencija o me|unarodnoj trgovini ugro`enim vrstama divqe flore i faune, skra}eno CITES ili tzv. Va{ingtonska konvencija iz 1973. godine, predstavqa me|unarodni sporazum kojim se obezbe|uje me|unarodna saradwa na za{titi odre|enih vrsta divqe faune i flore od prekomerne eksploatacije putem me|unarodnog prometa;
– Konvencija o za{titi mo~varnih stani{ta koja su od me|unarodnog zna~aja naro~ito kao stani{ta ptica mo~varica (Ramsarska konvencija, Iran, 1971);
– Konvencija o za{titi evropskog („divqeg”) `ivog sveta i prirodnih stani{ta, ili tzv. Bernska konvencija (Bern, 1979), koja predstavqa me|unarodni sporazum o o~uvawu vrsta flore i faune u prirodi i wihovih prirodnih stani{ta, naro~ito onih ~ija za{tita zahteva me|unarodnu saradwu.
In situ za{tita podrazumeva o~uvawe izvornih ekosistema, kao i o~uvawe, odr`avawe i oporavak populacija na prirodnim stani{tima odre|enih vrsta. Ugro`ene biqne i `ivotiwske vrste najboqe se mogu za{tititi ako se {tite i wihova prirodna stani{ta, odnosno ekosistemi za koje su neraskidivo vezane. Zakonom o za{titi `ivotne sredine Srbije i Zakonom o za{titi prirode odre|ene su vrste za{ti}enih podru~ja, odnosno prirodnih dobara. To su: nacionalni parkovi, parkovi prirode, predeli izuzetnih odlika, rezervati prirode, specijalni rezervati prirode, zaštićena staništa i spomenici prirode.U za{ti}enim prirodnim dobrima omogu}uje se odr`avawe celovitosti i nepovredivosti ekosistema, pa samim tim i za{tita ugro`enih biqaka i `ivotiwa koje predstavqaju wihovu sastavnu komponentu. Najve}i za{ti}eni prostori su nacionalni parkovi. To su ve}a podru~ja sa prirodnim ekosistemima visoke vrednosti u pogledu o~uvanosti, slo`enosti gra|e i biogeografskih
1) NP „Fru{ka Gora“
2) NP „\erdap“
3) NP „Tara“ – Pan~i}eva omorika u rezervatu Zvezda
4) NP „Kopaonik“
5) NP „[ar-planina“ – Livadi~ko jezero
6) „\avoqa Varo{“ kod Prokupqa –jedinstveni geomorfolo{ki fenomen i za{ti}eni spomenik prirode Srbije
7) „[alina~ki lug“ kod Smedereva – jedinstveni rezervat stare {ume hrasta lu`waka
1) Beloglavi sup ‡ ugro`ena i za{ti}ena vrsta le{inara u Srbiji
2) Ris ‡ kriti~no ugro`ena i za{ti}ena vrsta predatora u Srbiji
3) Mrki medved ‡ ugro`ena i za{ti}ena vrsta u Srbiji
4) Divokoza ‡ ugro`ena i za{ti}ena vrsta u Srbiji
obele`ja, sa raznovrsnim oblicima izvorne flore i faune, reprezentativnim fizi~ko-geografskim objektima i pojavama i kulturno-istorijskim vrednostima. Nacionalni parkovi predstavqaju izuzetne prirodne celine od nacionalnog zna~aja. U Srbiji ih ima pet (Fru{ka gora, \erdap, Tara, Kopaonik i [ar-planina).
Park prirode je podru~je sa dobro o~uvanim prirodnim svojstvima voda, vazduha i zemqi{ta, sa preovla|uju}im prirodnim ekosistemima i bez ve}ih degradacionih promena predeonog lika. U celini predstavqa zna~ajan deo o~uvane prirode i zdrave `ivotne sredine. Na teritoriji Srbije do sada je proglašeno sedamnaest parkova prirode, od kojih su najpoznatiji: Golija, Stara planina, Sićevačka klisura, Palić, Šargan–Mokra Gora, Klisura reke Mileševke itd.
Predeo izuzetnih odlika je relativno mawe podru~je `ivopisnih pejza`nih obele`ja, nenaru{enih primarnih vrednosti predeonog lika, sa oblicima tradicionalnog na~ina `ivota i kulturnih dobara, a tako|e i za{ti}ena okolina nepokretnih kulturnih dobara. Do sada je na teritoriji Srbije proglašeno šesnaest predela izuzetnih odlika: dolina Pčiwe, Miruša, klisura reke Gradac, Ovčarsko-kablarska klisura, Avala, Veliko ratno ostrvo itd. Rezervat prirode je izvorni ili neznatno izmewen deo prirode osobitog sastava i odlika biqnih i `ivotiwskih zajednica, kao delova ekosistema, namewenih prvenstveno odr`avawu genetskog fonda. Na teritoriji Srbije do sada je proglašeno ukupno čedrdeset sedam opštih i strogih rezervata prirode, kao što su: Kukavica, Kalenić, Ravnište, Rtaw, Crna reka itd.
Specijalni rezervat prirode je predeo u kome je posebno izra`ena jedna ili vi{e prirodnih vrednosti koje treba {tititi, odnosno prirodnih pojava koje treba pratiti ili usmeravati. Na teritoriji Srbije do sada su proglašena dvadeset dva specijalna rezervata prirode, kao što su: Jelašnička klisura, Ludaško jezero, Carska bara, Obedska bara, Koviqsko-petrovaradinski rit, Zasavica, Selevewske pustare, klisura reke Uvac, klisura reke Trešwice, Deliblatska peščara itd.
Zaštićeno stanište je područje koje obuhvata jedan tip ili više tipova prirodnih staništa značajnih za očuvawe jedne populacije divqih vrsta i wihovih zajednica ili više populacija divqih vrsta i wihovih zajednica. Do sada su u Srbiji proglašena dva takva staništa: bara Trskovača i Mali vršački rit, oba na području Vojvodine.
Spomenik prirode je prirodni objekat fizi~ki jasno izra`en i prepoznatqiv, reprezentativnih geomorfolo{kih, geolo{kih, hidrografskih, botani~kih i drugih obele`ja, po pravilu atraktivnog i markantnog izgleda ili neobi~nog na~ina pojavqivawa, kao i qudskim radom formirana botani~ka vrednost (pojedina~na stabla, drvoredi, parkovi, arboretumi, botani~ka ba{ta i dr.), ukoliko ona ima poseban zna~aj. Na teritoriji Srbije do sada je proglašeno i stavqeno pod zaštitu 316 spomenika prirode, od toga 256 spomenika prirode botaničkog karaktera i 70 geološkog i hidrološkog karaktera, na primer: Botanička bašta „Jevremovac“, Bawička šuma, stari platan kod Miloševog konaka, Petnička pećina, Resavska pećina, Đavoqa Varoš, vrelo Mlave, kawon Lazareve reke, Prizrenska Bistrica itd.
U Srbiji je do danas zaštićeno ukupno 474 područja i 2613 vrsta biqaka, životiwa i gqiva. Ipak, ukupna površina zaštićenih područja zauzima svega oko 6% naše teritorije. Prostornim planom Republike Srbije predviđeno je da se ukupna zaštićena površina do 2015. godine uveća na 10%, a do 2021. godine na 12%, koliko zahvataju sve zaštićene kopnene površine na svetu.
Botani~ka ba{ta „Jevremovac“ u Beogradu. – Za{ti}eni spomenik prirode i centar Ex situ za{tite ugro`enih biqnih vrsta Srbije
Mala sve}ica –proizvedena u kulturi tkiva
Lincura (Gentiana lutea) –ugro`ena i za{ti}ena lekovita biqka proizvedena u kulturi tkiva
Ex situ za{tita podrazumeva niz postupaka i metoda koji se primewuju radi o~uvawa, gajewa i razmno`avawa biqaka i `ivotiwa izvan wihovih prirodnih stani{ta. Ta druga (ex situ) stani{ta, koja se nalaze izvan onih prirodnih (in situ), naj~e{}e su botani~ke ba{te i zoolo{ki vrtovi, banke gena, odnosno banke semena i plodova, kao i specijalizovane laboratorije u kojima se, pod strogo kontrolisanim uslovima, biqni i `ivotiwski materijal sakupqen na prirodnim stani{tima mo`e dugo odr`avati i razmno`avati na specijalnim hranqivim podlogama. Naime, kada svi prethodni, preventivni oblici za{tite ugro`enih vrsta „ne urode plodom”, odnosno kada brojnost populacije neke ugro`ene biqne ili `ivotiwske vrste na wenom prirodnom stani{tu do|e do kriti~ne granice i{~ezavawa, pristupa se, po hitnom postupku, primeni neke od aktivnih metoda ex situ za{tite. Pored osnovnog ciqa da se po svaku cenu sa~uva geneti~ki materijal, smisao i krajwi ciq ex situ metoda za{tite jeste vra}awe, reintrodukcija ugro`enih vrsta na wihova prirodna stani{ta, sa kojih su i{~ezle ili postoji velika opasnost da nestanu.
Crvene kwige flore i faune su specijalizovane publikacije koje ve} samim nazivom i crvenom bojom svojih korica upozoravaju (alarmiraju) na opasnost od i{~ezavawa ugro`enih biqnih i `ivotiwskih vrsta. One predstavqaju izuzetno zna~ajnu stru~nonau~nu osnovu za zakonsku i prakti~nu za{titu organskih vrsta na odre|enoj teritoriji jer sadr`e niz korisnih informacija o stepenu ugro`enosti vrste, wenoj op{toj rasprostrawenosti i rasprostrawenosti na odre|enoj teritoriji, o karakteristikama stani{ta, faktorima ugro`avawa, specifi~nostima biologije i reprodukcije, preduzetim i neophodnim merama za{tite, mogu}nostima reintrodukcije i sl. Jednom re~ju, crvene kwige predstavqaju polazi{te za sve ozbiqne akcione programe i konkretna re{ewa za{tite ugro`enih vrsta.
Srbija je krajem 1999. godine dobila svoju prvu crvenu kwigu koja se odnosi na i{~ezle i krajwe ugro`ene biqne vrste. Naime, u skladu sa najvi{im svetskim kriterijumima, obra|ena je 171 biqna vrsta ili podvrsta iz najugro`enijih kategorija (EX – i{~ezla, EW – i{~ezla u prirodi, i CR – krajwe ugro`ena). Od toga su 4 vrste nepovratno izgubqene iz svetskog genofonda (EX) s obzirom na to da su pre i{~ezavawa `ivele samo na podru~ju Srbije. ^etrdeset {est vrsta je i{~ezlo sa prostora Srbije (EW Sr), ali se, na sre}u, jo{ uvek mogu na}i u susednim podru~jima ili u ex situ uslovima botani~ke ba{te, odakle se mogu reintrodukovati na nekada{wa prirodna stani{ta. A za 121 vrstu smatra se da su krajwe ugro`ene (CR Sr), sa velikom verovatno}om da u bliskoj budu}nosti nestanu sa na{ih prostora ili iz svetskog genofonda ukoliko im se ne pru`i odgovaraju}a za{tita.
S obzirom na realnu procenu nau~nika da je danas, u ve}oj ili mawoj meri, ugro`eno ~ak 20% ukupne flore Srbije, odnosno vi{e od 700 vrsta, proisti~e zakqu~ak da se daqi posao na izradi slede}ih tomova Crvene kwige flore Srbije mora nastaviti. U slede}im izdawima Crvene kwige flore Srbije bi}e obra|ene vrste koje pripadaju ni`im kategorijama ugro`enosti (EN – ugro`ene vrste, VU – rawive vrste, LR – vrste sa niskom verovatno}om
Crvena kwiga dnevnih leptira Srbije
Srbija se, sa ukupno 192 utvr|ene vrste dnevnih leptira, ubraja u faunisti~ki najbogatije zemqe Evrope. Me|utim, Crvenom kwigom je obuhva}eno ~ak 57 vrsta. Od toga, jedna vrsta je i{~ezla sa podru~ja Srbije, 22 vrste su ozna~ene kao ugro`ene, 24 imaju status rawivih, 7 vrsta se vode kao retke, dok su 3 vrste van opasnosti, mada su obuhva}ene evropskom Crvenom kwigom i za{ti}ene kao prirodne retkosti u Srbiji.
opasnosti i DD – vrste bez dovoqno podataka). Istovremeno, vr{e se intenzivne pripreme i za publikovawe posebnih crvenih kwiga faune ki~mewaka (ribe, vodozemci i gmizavci, ptice, sisari). Naravno, u ciqu efikasne za{tite ugro`enih vrsta, pored dobre nau~ne osnove koju nesumwivo pru`aju crvene kwige, potrebno je striktno i aktivno sprovo|ewe propisanih mera za{tite. Srbija to mo`e i mora u~initi kako ne bismo postali, citiraju}i velikog Josifa Pan~i}a, „besvesni du`nici koje potomstvo prokliwe”.
Hajdu~ka trava Kraqa Aleksandra – endemi~na i kriti~no ugro`ena vrsta koja raste samo na [ar-planini
\erdapska lala – i{~ezla vrsta sa podru~ja Srbije, zbog izgradwe akumulacionog jezera. Ipak, jo{ uvek je prisutna u Rumuniji
Ni{ka `utilovka –i{~ezla zbog izgradwe naseqa na brdu Gorica kod Ni{a, ~ime je uni{teno weno jedino stani{te u Srbiji. Prisutna je jo{ samo u severnoj Makedoniji
Banatski bo`ur – kriti~no ugro`ena reliktna vrsta ~ija se malobrojna populacija odr`ava jo{ samo u Deliblatskoj pe{~ari
Posledwi orao bradan. –Nekada su orlovi bradani krstarili nebom {irom na{e zemqe. Danas ih ovde vi{e nema. Na slici se vidi `enka posledweg para koji se gnezdio u Makedoniji. Otrovana je 1985. godine.
Banatski {afran – i{~ezla vrsta sa podru~ja Srbije, zbog izgradwe akumulacionog jezera \erdap. Ipak, jo{ uvek prisutna u Rumuniji
Stepske reliktne biqke – ugro`ene ili rawive usled pretvarawa stepa u poqoprivredne povr{ine
adaptacija – nasledna osobina koja svojim nosiocima omogu}ava da ostave ve}i broj potomaka (pove}ava verovatno}u pre`ivqavawa i/ili reprodukcije)
akrozom – krupan lizozom sme{ten u glavi spermatozoida, iznad nukleusa; sadr`i enzime koji razla`u omota~e jajne }elije tokom akrozomalne reakcije
alantois – jedan od tri ekstraembrionalna omota~a ki~mewaka, amniota. Ima ulogu u disawu embriona i odlagawu nepotrebnih materija
aleli – razli~iti oblici jednog gena amnion – ekstraembrionalni omota~ koji se prvi formira oko embriona. Lu~i amnionsku te~nost oko embriona
analogije – sli~ne osobine koje nemaju zajedni~ko poreklo
aneuploidija – promena broja pojedina~nih hromozoma
animalni pol – deo jajne }elije iz koje }e se razviti embrion (suprotno – vegetativni pol)
biogeografija – nauka koja prou~ava geografsko rasprostrawewe `ivih bi}a biomakromolekuli – molekuli velikih molekulskih masa i slo`ene strukture; nosioci najva`nijih biolo{kih funkcija; u wih spadaju nukleinske kiseline, proteini, lipidi i polisaharidi blastocel – prostor unutar blastule ispuwen te~no{}u blastomera – }elija nastala mitoti~kim deobama zigota tokom brazdawa blastula – stupaw u razvi}u embriona; nastaje brazdawem
vegetativni pol – deo jajne }elije u kome su skladi{tene hranqive materije za razvi}e embriona vodoni~ne veze – slabe, nekovalentne hemijske veze izme|u vodonikovog atoma koji je kovalentno vezan za jedan elektronegativni atom i nekog drugog elektronegativnog atoma
gamet – specijalizovane haploidne }elije. Nastaju procesom gametogeneze kod organizama koji se razmno`avaju polno; razlikuju se `enski (jajna }elija) i mu{ki (spermatozoid) gameti
gastrula – stupaw u razvi}u embriona; nasaje gastrulacijom gastrulacija – proces kojim se pokretima blastomera formira troslojna gastrula gen – deo molekula DNK koji nosi informaciju za sintezu jednog polipeptidnog lanca ili molekula rRNK, odnosno tRNK geneti~ki kod – skup pravila po kojima se u toku translacije redosled kodona (v.) u iRNK prvodi u redosled aminokiselina u polipeptidima
genom – geneti~ka informacija sadr`ana u haploidnom setu hromozoma
genomika – oblast molekularne biologije koja izu~ava strukturnu organizaciju genoma
genotip – geneti~ka konstitucija jedinke; mo`e se koristiti u {irem zna~ewu, kada se odnosi na skup svih gena, ili u u`em zna~ewu, kada se odnosi samo na posmatrani gen (ili gene)
genska terapija – geneti~ka manipulacija kojom se u genom somatskih ili germinativnih }elija unosi „ispravna” verzija gena u ciqu le~ewa geneti~ke bolesti nastale usled mutacije u tom genu genski fond – skup gena svih jedinki u populaciji
diferencijacija – proces nastajawa specifi~nih tipova }elija. Sintezom specifi~nih proteina }elije postaju deo odre|enog tkiva
DNK polimeraze – enzimi koji katalizuju osnovnu hemijsku reakciju u procesu replikacije DNK – dodavawe slede}eg nukleotida na 3’-kraj rastu}eg polinukleotidnog lanca
DNK ~ip – plo~ica mikroskopskih razmera za koju su, u pravilnom rasporedu, vezane hiqade fragmenata DNK; koristi se za ispitivawe ekspresije gena
egzon – deo gena koji nosi informaciju za sintezu celog polipeptidnog lanca ili jednog wegovog dela ekspresija gena – sinteza funkcionalnog proteinskog proizvoda nekog gena; sastoji se od niza procesa: transkripcije, obrade primarnog proizvoda transkripcije, transporta iRNK iz jedra u citoplazmu, translacije i modifikacije sintetisanog proteina kako bi se preveo u biolo{ki aktivan oblik
ektoderm – prvi, spoqa{wi sloj gastrule iz koga se razvija ko`a, ko`ne tvorevine, nervni sistem i ~ula endoderm – drugi, unutra{wi sloj gastrule iz koga se razvija digestivni trakt i wemu pridru`ene `lezde, plu}a
`ivi fosili – vrste koje se vrlo sporo mewaju i traju mnogo du`e od ostalih ~lanova svoje grupe
zigot – oplo|ena jajna }elija
implantacija – kod sisara proces usa|ivawa blastocista u tkivo uterusa
intron – deo gena koji ne nosi informaciju za sintezu polipeptida; nalazi se uvek izme|u dva egzona (v.)
informaciona RNK (iRNK) – RNK koja nosi informaciju za sintezu polipeptidnog lanca
kariotip – skup hromozoma u }eliji klon – geneti~ki istovetna kopija; identi~ne jedinke, }elije ili geni koji su kopije jednog istog pretka (jedinke, }elije ili gena)
klonirawe DNK – postupak dobijawa ve}eg broja identi~nih kopija fragmenata DNK (gena)
kodon – niz od tri nukleotida u DNK ili iRNK koji predstavqa {ifru za jednu amino-kiselinu, tj. odre|uje mesto te amino-kiseline u polipeptidnom lancu
lan~ana polimerazna reakcija – brz, jednostavan i potpuno automatizovan postu-
pak za dobijawe velikog broja kopija fragmenata DNK bilo kog porekla po~ev od minimalne koli~ine tih fragmenata
letalan – smrtonosan lokus – mesto gena na hromozomu
mezoderm – tre}i, sredi{wi sloj gastrule, izme|u ekto- i endoderma od koga se razvijaju mi{i}ni, skeletni i sistem za izlu~ivawe
metamorfoza – posleembrionalno razvi}e
tokom koga se nezreli stupwevi preobra`avaju u zrele (npr. larva u odrasli organizam
molekularna biotehnologija – savremena biotehnologija zasnovana na manipulacijama sa geneti~kim materijalom `ivih organizama monogenska bolest – bolest koja nastaje usled promene strukture jednog gena mutagen – agens koji pove}ava u~estalost mutacija (npr. hemikalija, zra~ewe)
nehistonski proteini hromatina – heterogena grupa proteina koji se nalaze u sastavu hromatina, a ne pripadaju familijama histona
ovulacija – osloba|awe jajne }elije prskawem folikula; proces ovulacije kontroli{u folikulostimuliraju}i i luteiniziraju}i hormoni hipofize
onkogen – mutirani gen koji ima sposobnost da izazove kancer
oplo|ewe – (fertilizacija) – spajawe haploidnih gameta (mu{kog i `enskog) u diploidni zigot
paleontologija – nauka koja se bavi izu~avawem fosila
peptidna veza – kovalentna veza koja se formira u toku procesa translacije izme|u amino grupe jedne amino-kiseline i karboksilne grupe slede}e amino-kiseline u nizu
placenta – kod placentalnih sisara specifi~no organizovan ekstraembrionalni deo za razmenu gasova i hranqivih materija izme|u embriona i majke
polinukleotid – polimer sastavqen od nukleotida kao gradivnih jedinica povezanih fosfodiestarskim vezama
polipeptid – polimer sastavqen od amino-kiselina kao gradivnih jedinica povezanih peptidnim vezama
poliploidija – prisustvo vi{e od dva kompletna seta hromozoma
promotor – regulatorni region DNK koji se nalazi „uzvodno” od gena i uti~e na wegovu transkripciju
regeneracija – obnavqawe }elija, tkiva ili organa
replikacija DNK – proces udvajawa geneti~kog materijala }elije koji uvek prethodi }elijskoj deobi; sinteza dva nova lanca DNK odvija se naspram roditeqskih lanaca koji imaju ulogu matrica; proces se odvija na semikonzervativan na~in, {to zna~i da posle }elijske deobe, svaka k}erka-}elija dobija po jedan roditeqski i jedan novi lanac DNK
ribozomske RNK (rRNK) – RNK koje zajedno sa proteinima u~estvuju u izgradwi ribozomskih podjedinica; prokariotske }elije sadr`e tri, a eukariotske ~etiri vrste rRNK
RNK polimeraze – enzimi koji katalizuju osnovnu hemijsku reakciju u procesu transkripcije – dodavawe slede}eg nukleotida na 3’-kraj rastu}eg polinukleotidnog lanca
specijacija – postanak vrsta stem }elije – izvorne, }elije od kojih postaju i obnavqaju se sve }elije organizma
transgena `ivotiwa/biqka – organizam u ~iji je genom geneti~kom manipulacijom ugra|en strani gen transkripcija – proces sinteze RNK na jednom od dva lanca DNK kao matrici; „prepisivawe” redosleda nukleotida u DNK u redosled nukleotida u RNK; u eukariotskim }elijama odvija se u jedru translacija – proces sinteze proteina na iRNK kao matrici; „prevo|ewe” redo-
sleda nukleotida u iRNK u redosled amino-kiselina u polipeptidnom lancu koji }e posle sinteze zauzeti odgovaraju}i prostorni oblik i ste}i biolo{ku ulogu; u eukariotskim }elijama odvija se u citoplazmi, na ribozomima (v.)
transportne RNK (tRNK) – mali molekuli RNK karakteristi~ne prostorne strukture, koji imaju ulogu „tuma~a” geneti~kog koda – jednim svojim krajem svaka tRNK vezuje odgovaraju}u amino-kiselinu i transportuje je do ribozoma, a drugim krajem (antikodonom) prepoznaje kodon u iRNK koji odgovara toj amino-kiselini
fenotip – osobine jedinke; mo`e se koristiti u {irem zna~ewu, kada se odnosi na skup svih osobina nekog organizma ili u u`em zna~ewu, kada se odnosi na odre|enu osobinu
filogenija – evoluciona istorija neke grupe organizama fosil – okameweni ostatak ili trag aktivnosti bi}a koje je nekada `ivelo
hemofilija – sklonost krvarewu usled poreme}enog zgru{avawa krvi
heterozigot – jedinka koja ima razli~ite alele za datu osobinu
histoni – proteini male molekulske mase, sa visokim sadr`ajem baznih (pozitivno naelektrisanih) amino-kiselina; imaju ulogu da se vezuju za DNK „pakuju}i” je u prostor (}eliju, jedro) hiqadama puta mawi nego {to je wena du`ina
hominidi – familija ~oveka, koja obuhvata sve vrste od odvajawa na{e linije i linija ~ovekolikih majmuna od zajedni~kog pretka
hominoidi – grupa koja obuhvata familije ~ovekolikih majmuna i ~oveka
homozigot – jedinka koja ima iste alele za datu osobinu
homologi hromozomi – hromozomi koji su isti po du`ini i polo`aju centromere, sadr`e iste gene i sparuju se me|usobno tokom mejoti~ke deobe
homologije – osobine koje vode poreklo od iste osobine zajedni~kog pretka.
Kuizen M.: Tajni `ivot `ivotiwa. Preistorija, BIGZ, 1991.
Ridli M.: Genom, Plato, Beograd, 2001.
Enciklopedija za mlade: Avantura `ivota. Larus, ITP „Zmaj“, Novi Sad, 1999. Gruba~, B.: Bradan – Ugro`ene vrste Jugoslavije, – Svjetlost, Sarajevo, 1990. Gruba~, B.: Suri orao, Zavod za zaštitu prirode Srbije, Beograd, 1998.
Ili}, M., Mileti}, S.: Moja prva kwiga o `ivotnoj sredini, otpadu i recikla`i, – Uprava za zaštitu `ivotne okoline Republike Srbije, Beograd, 2001.
Ili}, M., Stevanovi}-^arapina, H., Jovovi}, A., Peši}, R., Tanaskovi}, M., Jovanovi}, S., Petkovi}, G.: Strateški okvir za politiku upravqawa otpadom, Regionalni centar za `ivotnu sredinu za Centralnu i Isto~nu Evropu, kancelarija u Jugoslaviji, Beograd, 2002. Jeunesse, G.: Šume i drve}e, Korijeni znawa, Mozaik kwiga, Zagreb, 1995. Lakuši}, D. (ur.): Biodiverzitet i novi milenijum, Mala ekološka biblioteka 5, Društvo ekologa Srbije, Zavod za zaštitu prirode Srbije, Beograd, 2001.
Lakuši}, D. (ur.): Biqke koje nestaju – Ex situ zaštita me|narodno zna~ajnih biqaka Jugoslavije, Mala ekološka biblioteka 2., Društvo ekologa Srbije, Zavod za zaštitu prirode Srbije, Beograd, 2001. Lauševi}, R. (ur.): ^etiri obale – `ivi svet i prirodna baština sliva Dunava u Jugoslaviji, Mala ekološka biblioteka 1, Društvo ekologa Srbije, Zavod za zaštitu prirode Srbije, Beograd, 1999. Lauševi}, R. (ur.): I reke ubijaju zar ne?, Mala ekološka biblioteka 3, Društvo ekologa Srbije, Zavod za zaštitu prirode Srbije, Beograd, 2000. Orlovi}, V., Ostoji}, D. (ur.): Otkrivawe Tare, Mala ekološka biblioteka 4, Društvo ekologa Srbije, Zavod za zaštitu prirode Srbije, Beograd, 2001. Vevers, G.: Veliki atlas `ivotiwa, Mladinska kwiga, Qubqana, 1989. Stevanovi}, V. (ur.): Crvena kwiga flore Srbije 1, Iš~ezli i krajwe ugro`eni taksoni, Ministarstvo za `ivotnu sredinu Republike Srbije, Biološki fakultet Univerziteta u Beogradu, Zavod za zaštitu prirode Republike Srbije, 1995.
Stevanovi}, V., Vasi}, V. (ur.): Biodiverzitet Jugoslavije sa pregledom vrsta od me|narodnog zna~aja, Ecolibri, Beograd, Biološki fakultet, Beograd, 1995. Stevanovi}, V., Kne`evi}, L. (ur.): Enciklopedija `ivotna sredina i odr`ivi razvoj, Ecolibri, Beograd, Zavod za uxbenike i nastavna sredstva, Srpsko Sarajevo, 2003. Jakši}, P.: Crvena kwiga dnevnih leptira, Zavod za zaštitu prirode Srbije, Beograd, 2003.
http://www.ncbi.nlm.nih.gov/Omim (Katalog gena i geneti~kih poreme}aja kod ~oveka)
http://www.nature.com/ (Struktura genoma ~oveka)
http://www.rcsb.org/pdb/ i http://www3.ncbi.nlm.hih.gov/Entrez/index.html/ (Primarna struktura proteina)
http://www.med.upenn.edu/meded/public/berp/overview/BV 1.html?18 http://www.carnegieinstitution.org/first light case/horn/devbiol.html http://www.uoguelph.ca/zoology/devobio/dbindex.htm - Gametogenesis http://embryo.soad.umich.edu/resources/morph.mov (Biologija razvi}a)
дr Dragana Cvetkovi}
dr Dmitar Lakuši}
dr Gordana Mati}
dr Aleksandra Kora}
dr Slobodan Jovanovi}
BIOLOGIJA
za IV razred gimnazije prirodno-matemati~kog smera Osmo izdawe, 2020. godina
Izdava~
Zavod za uxbenike, Beograd Obili}ev venac 5 www.zavod.co.rs
Likovniurednik
Branislav Nikoli}
Dizajn
Neboj{a Dolova~ki
Korice Aida Spasi}
Lektor Jelka Jovanović
Likovno-grafi~ka oprema Linea Art
Grafi~ki urednik Stevan Paković
Korektor
Tamara Bačković
Obim: 32,5 {tamparskih tabaka
Format: 20,5 h 26,5 cm
Tiraž: 3 000 primeraka Rukopis predat u {tampu februara2020. godine. [tampawe zavr{eno marta 2020. godine [tampa „ Planeta print“, Beograd