





278 Rodziny nietoperzy
279 Słowniczek
281 Bibliografia
283 Indeks
288 Podziękowania



SKAMIENIAŁOŚCI NIETOPERZY
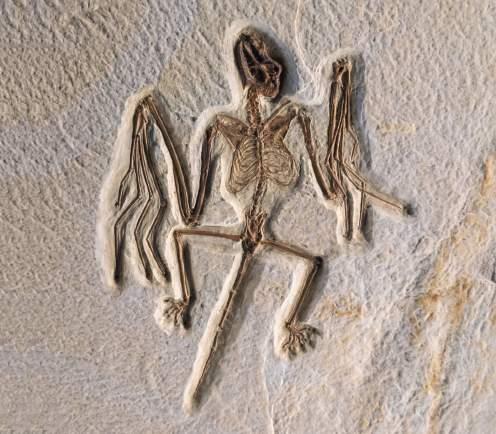
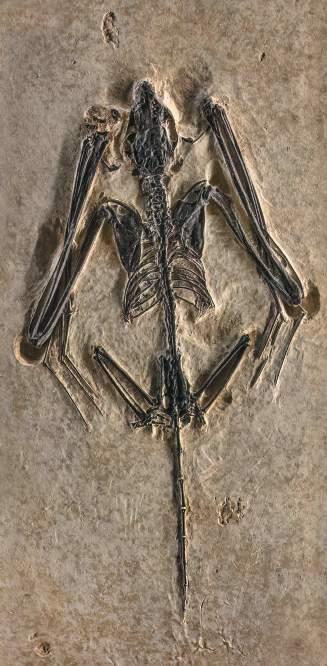
Najstarszy znany skamieniały szkielet nietoperza ma około 52,5 miliona lat i pochodzi z eocenu. Odkryto go w 2003 roku w tak zwanej formacji Green River w stanie Wyoming, na terenie Stanów Zjednoczonych. Należy do wymarłego gatunku Onychonycteris finneyi, który miał najprymitywniejsze cechy ze wszystkich znanych skamieniałych nietoperzy. Przed tym odkryciem sądzono, że najbardziej prymitywnym latającym ssakiem z tych samych osadów (a więc i z tego samego okresu) jest Icaronycteris index, udokumentowany w postaci licznych kompletnych szkieletów. Jednakże Onychonycteris, który był większy od Icaronycteris i innych eoceńskich nietoperzy, miał prymitywniejsze
proporcje kończyn i – co najważniejsze i bardzo niezwykłe – dobrze rozwinięte pazury na każdym palcu w skrzydle. Nazwa rodzajowa Onychonycteris wywodzi się od greckich słów onycho („mający pazury”) i nycteris („nietoperz”), natomiast epitet gatunkowy finneyi nadano na cześć badaczki Bonnie Finney (1951–2013). Znalazła ona oryginalny holotyp (skamieniałość formalnie uznawaną za reprezentatywną dla tego gatunku), przechowywany w Królewskim Muzeum Ontario w Toronto, w Kanadzie. Onychonycteris finneyi miał wyjątkowo krótkie i szerokie skrzydła – niski współczynnik proporcji (zob. s. 62) – oraz relatywnie krótkie i małe końcówki skrzydeł. Pod tym względem jego skrzydła przypominają
skrzydła istniejących współcześnie brodawkonosowatych (zob. np. brodawkonosa małego, Rhinopoma hardwickii, s. 178), a jego styl lotu polegał na naprzemiennym trzepotaniu skrzydłami i szybowaniu. Długie kończyny tylne tego nietoperza również mogły pomagać mu przemieszczać się za pomocą szybowania i wspinania. Ponieważ wysunięto hipotezę, że szybowanie może być etapem pośrednim w rozwoju prawdziwie aktywnego, polegającego na trzepotaniu skrzydłami lotu nietoperzy, więc niewykluczone, że O. finneyi stanowi brakujące ogniwo w naszej wiedzy o ewolucji tych zwierząt.
W zapisie kopalnym nie zachowały się szczegółowe cechy wyglądu najwcześniejszych nietoperzy, ale współczesne gatunki są pod tym względem bardzo zróżnicowane. Siedlisko, typ echolokacji oraz dieta nietoperzy odpowiadają za różnorodność ich wzorców ubarwienia, kształtu skrzydeł, a zwłaszcza wyglądu pyszczka i uszu. Niektóre nietoperze ze zdolnością do echolokacji wykształciły „liście nosowe” służące jako megafony dla wydawanych przez nie sygnałów (emitowanych przez nos), a liczna grupa tych ssaków ma bardzo duże, ruchome uszy, umożliwiające lepsze słyszenie powracającego echa emitowanych dźwięków. Natomiast nietoperze, które mają „gładkie pyszczki”, na przykład rudawkowate, przypominają psy lub lisy (ale ze skrzydłami) i z antropomorficznego punktu widzenia uznawane są za całkiem piękne, a w związku z tym niekiedy określa się je mianem „podniebnych szczeniąt” (sky puppies).
Onychonycteris finneyi (po lewej) to najprymitywniejszy z odkrytych dotychczas nietoperzy. Miał pazury na wszystkich palcach. Icaronycteris index (po prawej) pochodzi z tego samego okresu, ale wykazuje bardziej zaawansowane cechy. Oba te wymarłe gatunki można łatwo zidentyfikować jako nietoperze
ROZWÓJ EWOLUCYJNY
Ewolucja drogą doboru naturalnego często zachodzi szybciej, niż się oczekuje, a to przyspieszenie ma związek z oddziaływaniem na mechanizmy rozwojowe. Zmiany w synchronizacji, kolejności albo regulacji zdarzeń rozwojowych mogą mieć znaczący wpływ na fenotyp organizmu. Kiedy dobór naturalny oddziałuje na procesy rozwojowe, cechy ancestralne, takie jak obecność ogona u ssaków, ulegają niekiedy utrwaleniu w procesie rozwoju organizmu w macicy. Dotyczy to nawet ludzi – ich zarodki na wczesnych stadiach rozwoju mają ogon podobny do tego posiadanego przez inne naczelne. Po ośmiu tygodniach rozwoju ogon znika, łącząc się z kością guziczną (ogonową). Badania dotyczące tego, jak cechy rozwojowe mogą pomóc nam zrozumieć związki ewolucyjne, określane są skrótem „evo-devo” (od evolutionary development).
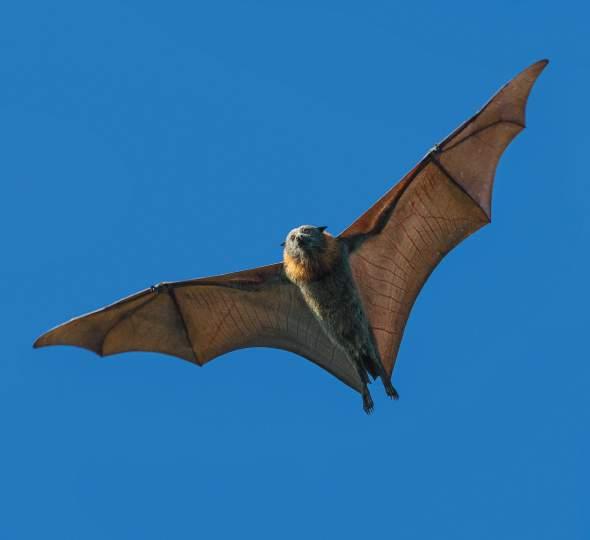
Rudawkowate, takie jak ta rudawka szarogłowa (Pteropus poliocephalus), nie mają ogona, lecz tylko małą błonę między stopami (uropatagium, czyli błonę ogonową)
EWOLUCJA NIETOPERZY
Jak nietoperze powstały z grupy małych, nocnych, owadożernych ssaków, aby móc swobodnie podbić nocne niebo? Częściowej odpowiedzi na to pytanie zaczęły dostarczać porównawcze badania procesu rozwoju kończyn przednich u myszy i nietoperzy. We wczesnych stadiach, kiedy tworzy się model chrzęstny, kończyny przednie myszy i nietoperzy mają podobną wielkość. W miarę namnażania się komórek szybko dochodzi do zróżnicowanego wydłużenia palców i kości długich kończyny nietoperza. Różnice w tempie wzrostu tych kości w trakcie rozwoju zapewniają częściowe wyjaśnienie różnic w proporcjach kości u różnych gatunków skrzydlatych ssaków. Przykładowo podkasańcowate, takie jak podkasaniec Schreibersa (Miniopterus schreibersii, s. 42), mają wydłużone kości środkowego palca, a przez to posiadają długie, wąskie skrzydła i potrafią szybko latać. Okazuje się, że u nietoperzy za włączanie takiego procesu wzrostu palców w różnym czasie i tempie odpowiadają inne geny niż u pozostałych ssaków.
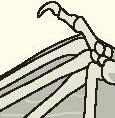
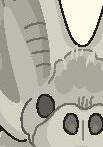
Wydłużone przedramię i palce zapewniają rusztowanie dla mocnej, ale elastycznej błony w skrzydłach nietoperza, która rozwija się w tym samym czasie. Skrzydło nietoperza składa się z trzech błon: międzypalcowej (dactylopatagium); skrzydłowej (plagiopatagium) wzdłuż i poniżej przedramienia, rozciągającej się do piątego palca i kostki; oraz przedskrzydłowej (propatagium) wzdłuż i powyżej przedramienia, która łączy nadgarstek z ramieniem. Czwarta błona, ogonowa (uropatagium), występuje u większości nietoperzy między kończynami tylnymi. Ogon nietoperza, o ile zwierzę go ma, może być całkowicie zamknięty w błonie ogonowej albo z niej wystawać.
wydłużone palce
Szczegółowe cechy skrzydła nietoperza
Skrzydło nietoperza składa się z licznych odcinków błon rozpiętych na rusztowaniu z kości przedramienia i dłoni.
Spośród czterech błon w skrzydle nietoperza tylko błona międzypalcowa ma wspólne pochodzenie ewolucyjne z tą u innych ssaków. W przypadku ssaków w trakcie wczesnych stadiów rozwoju zarodkowego między rosnącymi palcami dłoni i stóp występuje błona skórna. U większości ssaków, takich jak myszy, komórki tworzące tę błonę obumierają, co skutkuje rozdzieleniem palców dłoni i stóp. U nietoperzy ten proces zachodzi tylko w przypadku stóp, a błona skórna między palcami pozostaje. Błona przedskrzydłowa, jedna z trzech nowych błon w skrzydłach latających ssaków, powstaje w macicy z wyrostków skórnych z boku ciała. Sposób powstania pozostałych dwóch błon jest niejasny, ale prawdopodobnie podobny. Niezależnie od tego, jak się te cztery błony rozwijają, jest oczywiste, że są one korzystne dla nietoperzy i musiały być faworyzowane przez dobór naturalny. Dotyczy to zwłaszcza błony skrzydłowej, która tworzy płat nośny niezbędny do generowania siły nośnej i ciągu podczas lotu. kostka ogon
błona międzypalcowa
wydłużone przedramię
błona przedskrzydłowa
błona skrzydłowa
kość piętowa
błona ogonowa

Ciało nietoperza jest cudem ewolucji, zbudowanym tak, aby zwierzęta te mogły aktywnie latać w wyjątkowy, właściwy tym ssakom sposób. Oprócz wspaniałych skrzydeł, niemal każda część organizmu nietoperza wyewoluowała z biegiem czasu, spełniając unikalne anatomiczne, fizjologiczne i energetyczne wymagania, niezbędne dla latającego ssaka. Te wymogi są szczególnie istotne z punktu widzenia samic nietoperzy, które muszą latać w ciąży, a także przenosić młode w trakcie poszukiwania pożywienia.
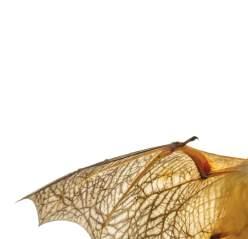
U nietoperzy najoczywistszą anatomiczną adaptacją do lotu jest „rękoskrzydło”, które umożliwia aktywny lot (zob. s. 25). Ten mocno zmodyfikowany organ, złożony z długich, delikatnych kości, między którymi rozciągnięta jest skóra, to coś więcej niż wydaje się na pierwszy rzut oka. Skóra skrzydła nietoperza (patagium) jest niewiarygodnie cienka, delikatna i elastyczna, co pozwala jej się rozciągać i poruszać w sposób
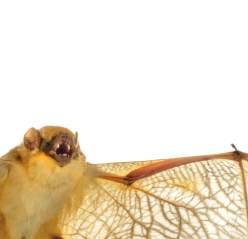
umożliwiający bardzo zwrotny lot. Elastyczność patagium umożliwia nietoperzom dostosowywanie kształtu i krzywizny skrzydeł do różnych prędkości i do manewrów w locie. Za tę elastyczność odpowiada złożona sieć naczyń krwionośnych, mięśni i tkanek łącznych. Bogaty zasób naczyń krwionośnych utrzymuje integralność tkanek skrzydła i ułatwia szybkie gojenie się naczyń skaleczeń skóry.
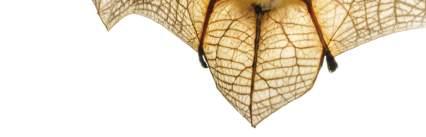
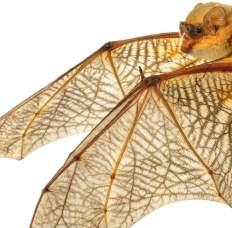
U niektórych gatunków, takich jak łatnik pstry (Glauconycteris variegata, s. 84), żyłkowanie jest elementem widocznych wzorów na skrzydłach. Błona lotna nie jest jedynie płatem skóry, lecz żywą tkanką wspomagającą lot oraz wymianę gazów i termoregulację. Ponieważ naczynia krwionośne znajdują się blisko powierzchni, więc nietoperze mogą pobierać tlen i wydalać dwutlenek węgla przez skórę, co zwiększa wydajność wymiany gazowej w trakcie długich, kosztownych energetycznie przelotów. Dzięki naczyniom krwionośnym skrzydła mogą również szybko wypromieniowywać ciepło z ciała podczas lotu, aby zwierzę nie dostało udaru cieplnego.
Długie, delikatne kości palców nietoperza stanowią rusztowanie dla błony lotnej. Ważą niewiele, dzięki czemu oszczędzana jest energia, ale w trakcie lotu podlegają silnym naprężeniom. Aby to skompensować, nietoperze mają przy łokciu dodatkową kość nazywaną trzeszczką łokciową. Powstaje ona w wyniku stwardnienia mięśnia trójgłowego i pomaga wzmocnić staw. Podobnie nietoperze z błoną lotną między kończynami tylnymi (błoną ogonową) mają chrzęstną ostrogę w okolicach kostki, określaną mianem kości piętowej, która zapewnia strukturalne wsparcie skrzydłu nietoperza. Co ciekawe, skóra błony ogonowej jest grubsza i wytrzymalsza od innych części błony lotnej, co może pomagać w zmniejszeniu uszkodzeń wywoływanych przez twarde części owadów, gdy jest wykorzystywana do zagarniania ofiar. Chociaż kości palców od II do V w skrzydle są całkowicie zamknięte w błonie lotnej, to kciuk z niej wychodzi i zwykle zakończony jest pazurem, co może pomagać we wspinaniu się, przebywaniu w kryjówkach i chwytaniu pokarmu.
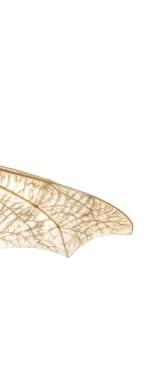
Łatnik pstry to dobrze znany gatunek występujący w Afryce Subsaharyjskiej. Łatwo go rozpoznać po retikularnym wzorze na skrzydłach, tworzonym przez widoczne naczynia krwionośne oraz włókna mięśni i elastynę. Tak jak wszystkie inne gatunki z rodziny mroczkowatych, ma on długi ogon całkowicie zamknięty w błonie ogonowej
Echolokacja to niezwykła zdolność do przetwarzania powracającego echa fal dźwiękowych na obrazy w umyśle. Umożliwia ona nietoperzom „widzenie” za pomocą dźwięku. Nie tylko te zwierzęta wykorzystują sonar biologiczny, ale w przypadku nietoperzy osiągnął on stan ewolucyjnej perfekcji.
Na najbardziej podstawowym poziomie echolokacja polega na emitowaniu dźwięku i wykorzystywaniu jego powracającego echa do celów nawigacyjnych. Echolokacja wyewoluowała niezależnie w różnych grupach zwierząt, wliczając w to wieloryby-zębowce, delfiny, morświny, ryjówki, tenreki, nietoperze i nieliczne ptaki, a czasem nawet ludzi. U nietoperzy dźwięki echolokacyjne mogą być tworzone w krtani (większość gatunków), poprzez uderzanie skrzydłami (niektóre gatunki) albo wskutek klikania językiem (do ośmiu gatunków).
Sygnały echolokacyjne niektórych gatunków mogą być słyszalne dla ludzi, choć słabo. Większość nietoperzy wydaje jednak dźwięki niesłyszalne dla człowieka (ultradźwięki). Echolokacja wyjaśnia zagadkę opisaną pod koniec XVIII wieku przez włoskiego naukowca Lazzaro Spallanzaniego i szwajcarskiego lekarza Louisa Jurine’a, którzy wykazali, że ślepe nietoperze potrafią doskonale nawigować, ale nie są w stanie tego robić, gdy zasłoni im się uszy. Nie mając możliwości wykrycia ultradźwiękowych sygnałów nietoperzy, nie mieli szansy na wytłumaczenie tej „usznej nawigacji”. Zagadkę rozwiązano dopiero w latach trzydziestych XX wieku, kiedy amerykański naukowiec Donald Griffin zastosował nowo opracowany aparat zdolny do detekcji dźwięków przekraczających zakres słyszalności człowieka. Przez blisko 100 lat od odkrycia ultradźwięków intensywnym badaniom poddawano wyrafinowanie i różnorodność sygnałów echolokacyjnych nietoperzy oraz ich zdolności przetwarzania neuronowego, a wyniki wykorzystano do opracowania technologii sonarowej i radarowej.
Powracające echo Wiele nietoperzy wykorzystuje echolokację do nawigowania i wykrywania ofiar za pomocą emitowania sygnałów i nasłuchiwania powracającego echa, które odbija się od ofiar i innych obiektów.
Echolokacja wyewoluowała u nietoperzy prawdopodobnie razem ze zdolnością do lotu, ale rozwoju fizjologicznych i behawioralnych cech, takich jak wytwarzanie i nasłuchiwanie dźwięków, nie da się łatwo prześledzić na podstawie zapisu kopalnego – zwłaszcza dlatego, że czaszki najstarszych skamieniałych nietoperzy uległy zmiażdżeniu wskutek procesu fosylizacji. Ten problem udało się rozwiązać dopiero niedawno, gdy we Francji odkopano zachowaną w trójwymiarze, liczącą 50 milionów lat czaszkę nietoperza. Po przeanalizowaniu ślimaka w uchu wewnętrznym oraz innych obszarów tej czaszki badacze doszli do wniosku, że jej
posiadacz najpewniej był zdolny do zaawansowanej echolokacji krtaniowej, co wskazuje, że echolokacja najprawdopodobniej wyewoluowała u nietoperzy tylko jeden raz i to bardzo dawno temu.
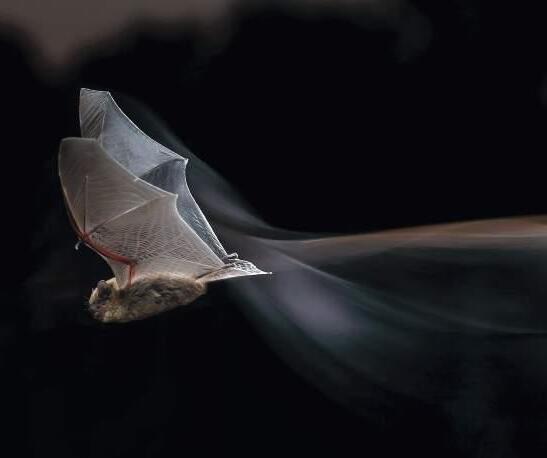
Karlik malutki (Pipistrellus pipistrellus) to gatunek często występujący w Europie i być może to właśnie u niego Spallanzani odkrył zdolność nietoperzy do „widzenia” za pomocą dźwięku