SPIS TREŚCI
1 WPROWADZENIE
1.1. ZROZUMIENIE PODSTAW PASOŻYTNICTWA 6
Pasożyty żyją w swoich żywicielach lub na nich i wyrządzają im szkody 6
Opinie na temat definicji kluczowych aspektów pasożytów oraz ich biologii są zróżnicowane 7
Czas przebywania pasożyta w lub na żywicielu jest zmienny 9
Istnieje wiele innych sposobów klasyfikacji pasożytów 10
Pasożyty omówione w niniejszej książce 13
1.2. ŻYWICIEL – JEDYNA DROGA ŻYCIOWA DLA PASOŻYTÓW 13
Żywiciele dzielą się na kilka kategorii 13 Żywiciele rezerwuarowi 15
Wektory 15
1.3. DOCENIENIE PASOŻYTNICTWA W PRZYRODZIE 16
Pasożytnictwo to jedna z form symbiozy 16
Parazytoidy balansują na granicy drapieżnictwa i pasożytnictwa 18
Rozumienie pasożytnictwa staje się bardziej złożone, gdy dostrzegamy jego powiązania z innym powszechnym rodzajem symbiozy – mutualizmem 19
2.1. RÓŻNORODNOŚĆ GATUNKÓW PASOŻYTÓW
Wymaga wyjaśnienia, czym jest gatunek pasożyta 32
Biorąc pod uwagę powyższe rozważania, ile gatunków pasożytów zamieszkuje Ziemię? 35
Taksonomia, systematyka, filogenetyka i drzewa ewolucyjne jako podstawowe podejścia do zrozumienia różnorodności pasożytów 39
Osiągnięto ogromny postęp w odkrywaniu ogólnej różnorodności życia 41 Wiele bakterii jest pasożytami 43
Eukarionty to bardzo zróżnicowana grupa, obejmująca wiele rodzajów pasożytów 44
Apicomplexa to ogromna, ważna i niemal wyłącznie pasożytnicza grupa organizmów
50 Wiele dobrze poznanych pasożytów należy do znanych grup organizmów wielokomórkowych 52
2.2. WNIOSKI DOTYCZĄCE PASOŻYTNICTWA
WYNIKAJĄCE Z BADAŃ NAD JEGO RÓŻNORODNOŚCIĄ 63
Można odkryć filogenetyczne powiązania tajemniczych pasożytów
63
Badania nad różnorodnością ujawniają, w jaki sposób poszczególne pasożyty nabywały zdolności zarażania ludzi 67
Badania nad różnorodnością mogą pomóc w rekonstrukcji biogeografii historycznej pasożytów
Wychodzą na jaw zespoły kryptycznych gatunków pasożytów
Badania nad różnorodnością pasożytów pomagają stworzyć lepszą podstawę taksonomii
Czy pasożyty dają początek organizmom wolno żyjącym?
2.3. RÓŻNORODNOŚĆ GENETYCZNA RÓWNIEŻ WYSTĘPUJE W OBRĘBIE GATUNKÓW PASOŻYTÓW
Różnorodność gatunków pasożytów jest ogromna i ważna
69
71
72
74
75
75
2.4. GENOMY PASOŻYTÓW – W DUŻEJ MIERZE NIEWYKORZYSTANA KOPALNIA RÓŻNORODNOŚCI
Badania nad pasożytami odgrywają ważną rolę w pracach nad sekwencjonowaniem genomu 78
Ewolucja kompaktowych genomów o zmniejszonej wielkości jest charakterystyczna dla niektórych pasożytów 80
Genomy pasożytów wykazują również kilka nowych funkcji i ekspansję niektórych rodzin genów 82
Badania genomu wykazały, że horyzontalny transfer genów (HGT) jest częstą cechą genomów pasożytów 85
Genomy pasożytów zmieniają się dynamicznie 86
Badania nad modyfikacjami epigenetycznymi genomów pasożytów są na wczesnym etapie, ale prawdopodobnie będą miały charakter transformacyjny
Czego genomy pasożytów jeszcze nam nie powiedziały
3.1. PERSPEKTYWA HISTORYCZNA CYKLU
ROZWOJOWEGO PASOŻYTA 100
Wczesne badania medyczne i przyrodnicze doprowadziły do zrozumienia cykli rozwojowych pasożytów 100
Transmisję przez komary po raz pierwszy wykazano dla filarii 102
Transmisja nicieni przez stawonogi sugeruje, że inne choroby mogą być przenoszone w podobny sposób 103
3.2. PRZEGLĄD CYKLI ROZWOJOWYCH PASOŻYTÓW 105
Pasożyty o prostym cyklu rozwojowym wykorzystują tylko jednego żywiciela 105
Dla pasożytów o złożonym cyklu rozwojowym niezbędnych jest dwóch lub więcej żywicieli 106
3.3. LISTA RZECZY DO ZROBIENIA PRZEZ PASOŻYTA 110
Skuteczna transmisja jest niezbędna dla wszystkich pasożytów 110
Wysokie wskaźniki rozrodczości są powszechne w wielu cyklach rozwojowych pasożytów 119
Apicomplexa takie jak Toxoplasma gondii rozmnażają się zarówno płciowo, jak i bezpłciowo 122
Aby osiągnąć transmisję, pasożyty mogą stosować inne strategie niż duża płodność 122
Wiele czynników może utrudniać zrozumienie transmisji pasożytów 124
Modele matematyczne stanowią przydatne narzędzie do przewidywania szybkości transmisji 125
Wiele pasożytów musi migrować do określonych lokalizacji lub tkanek w organizmie żywiciela 126
Nie zawsze jest jasne, w jaki sposób wyewoluowała złożona migracja w obrębie żywiciela 129
Pasożyty są przystosowane do utrzymywania pozycji na lub w żywicielu 131
Znalezienie partnera jest wymogiem dla wielu pasożytów rozmnażających się płciowo 132
Propagule uwalniane są przez drogę opuszczenia żywiciela 133
Pasożyty przechodzą złożone zmiany rozwojowe w odpowiedzi na sygnały środowiskowe 134
Zmiany rozwojowe są związane ze zmianami w ekspresji genów 136
Zaczynamy rozumieć mechanizmy odpowiedzialne za różnice w ekspresji genów podczas rozwoju 137
4.1. PRZECIWPASOŻYTNICZA ODPOWIEDŹ IMMUNOLOGICZNA Z PERSPEKTYWY EWOLUCYJNEJ
Prokarionty rozwinęły niezwykłe innowacje immunologiczne w ciągu miliardów lat walki z pasożytami
147
147
Różnorodne pasożyty zagrażają roślinom, więc warto wiedzieć, jakie mają możliwości obrony 150
Wprawdzie rośliny nie dysponują wyspecjalizowanymi komórkami odpornościowymi, nadal są jednak zdolne do skutecznej i długotrwałej obrony przed pasożytami
150
Liczne gatunki nicieni to wyspecjalizowane pasożyty roślin 152
Bezkręgowce mają odrębne i różnorodne wrodzone układy odpornościowe 154
Bezkręgowce, w tym wektory i żywiciele pośredni, rozwijają odpowiedź immunologiczną, aby zwalczyć pasożyty 157
Bezkręgowce dla wsparcia odpowiedzi immunologicznej przeciwko pasożytom przyjmują określone zachowania 159
Pasożyty hamują, manipulują i niszczą odpowiedź obronną bezkręgowców
160
Niektóre pasożyty wykorzystują symbiotycznych partnerów do osłabienia odpowiedzi immunologicznej bezkręgowych żywicieli 162
Niektóre bezkręgowce angażują symbionty do wzmocnienia własnej obrony 163
Badacze mają nadzieję, że uda im się tak manipulować układem odpornościowym bezkręgowców, aby zwalczać pasożyty 165
4.2. PRZEGLĄD DZIAŁAŃ OBRONNYCH KRĘGOWCÓW 166
4.3. ODPOWIEDŹ IMMUNOLOGICZNA PRZECIW
PASOŻYTOM EUKARIOTYCZNYM 168
Rozpoznanie PAMPs inicjuje odpowiedź immunologiczną przeciw pierwotniakom 168
Pierwotniaki stymulują odpowiedź zarówno humoralną, jak i komórkową 171
Odporność chroniąca przed malarią rozwija się po wielokrotnym zarażeniu 174
Odpowiedź immunologiczna pojawia się kolejno przeciw wszystkim stadiom w cyklu rozwojowym
Plasmodium 176
Coraz lepiej rozumiemy odpowiedź immunologiczną na zarażenie helmintami 178
Helminty wywołują silną odpowiedź Th-2 179
W zmaganiach z nicieniami jelitowymi dochodzi do rozległych zmian w nabłonku jelitowym 180
4.4. UCIECZKA PASOŻYTÓW PRZED OBRONĄ
ŻYWICIELA 184
Wiele pasożytów w nieswoistej odpowiedzi immunologicznej unika akcji układu dopełniacza 185
Pasożyty wewnątrzkomórkowe wykształciły mechanizmy zapobiegające ich niszczeniu w komórkach żywiciela 186
Pasożyty mogą zakłócać wewnątrzkomórkowe szlaki sygnałowe 187
Niektóre pasożyty zakłócają proces prezentacji antygenu, co prowadzi do osłabienia odpowiedzi immunologicznej 188
Niektóre pasożyty regularnie zmieniają antygeny powierzchniowe, aby uniknąć odpowiedzi immunologicznej 189
Pasożyty często hamują lub zmieniają odpowiedź immunologiczną żywiciela przez zakłócenie komunikacji wewnątrzkomórkowej 192
Niektóre pasożyty mogą się stać niewidoczne dla układu odpornościowego 196
Różne pasożyty mogą osłabiać funkcje efektorowe przeciwciał 196
ROZDZIAŁ 5 PASOŻYT KONTRA
ŻYWICIEL: PATOLOGIA I CHOROBA 205
5.1. PATOLOGIA WYNIKAJĄCA Z ZARAŻENIA
PASOŻYTAMI 206
Pasożyty mogą wzbudzać patogenezę na różne sposoby 207
Klasyfikacja patologii polega na przyporządkowaniu jej do jednej z kilku ogólnych kategorii 207
Pasożyty mogą bezpośrednio uszkadzać komórki, tkanki i narządy żywiciela
Różne czynniki wpływają na wirulencję
208
Entamoeba histolytica 211
Malaria może prowadzić do poważnych powikłań podczas ciąży 212
Zarażenie pasożytami może zmieniać wzorce wzrostu komórek żywiciela 213
Wiele pasożytów niekorzystnie wpływa na odżywienie żywicieli
218
Niedokrwistość jest poważnym powikłaniem wielu inwazji pasożytniczych 219
Zarażenie Plasmodium może powodować niedobór żelaza u żywiciela
220
Toksyny rzadziej przyczyniają się do patologii wywołanej przez pasożyty 221
Patologia często wynika z immunologicznego uszkodzenia komórek i tkanek żywiciela 223 Immunopatologia jest ważnym elementem patologii obserwowanej w malarii 225
Ziarniniaki powstałe w odpowiedzi na antygeny pasożyta pełnią funkcję zarówno ochronną, jak i patologiczną 226
Pasożyty mogą się przyczynić do autoimmunizacji 229
Pasożyty, zmieniając mikrobiom żywiciela, mogą pogłębiać chorobę 230
5.2. PASOŻYTY A BEHAWIOR ŻYWICIELA 231
Niektóre pasożyty mogą modyfikować behawior żywiciela dla lepszej transmisji 231 Mechanizmy, które pasożyty wykorzystują do zmiany behawioru żywiciela, nie zostały wyjaśnione 232
Wydzielane przez pasożyty cząsteczki, które wpływają na aktywność neurologiczną żywiciela, pozostają w dużej mierze niezidentyfikowane 234
5.3. UDZIAŁ PASOŻYTÓW W ŁAGODZENIU PATOLOGII 235
Inwazje pasożytnicze mogą być niezbędne dla prawidłowego rozwoju układu odpornościowego 236
Niektóre helminty jelitowe mogą hamować reakcję zapalną żywiciela 237
Zarażenie helmintami jelitowymi aktywuje limfocyty T regulatorowe 238
ROZDZIAŁ 6 EKOLOGIA PASOŻYTNICTWA 245
6.1. OKREŚLANIE SIEDLISK PASOŻYTÓW 246
Pasożyty sukcesywnie kolonizują różne siedliska w trakcie cyklu rozwojowego 247
Pasożyty mają preferencje dotyczące mikrosiedlisk i zajmują określone miejsca wewnątrz żywiciela lub na nim 247
Specyficzność żywicielska jest jedną z najbardziej charakterystycznych cech pasożytnictwa 251
Koncepcja filtrów spotkania i dopasowania pomaga zrozumieć, w jaki sposób określany jest zakres gatunków żywicieli wykorzystywanych przez pasożyta
254
Pochodzenie i konsekwencje specyficzności żywicielskiej jako przedmiot debat naukowych 256
6.2. BIOLOGIA POPULACJI PASOŻYTÓW
Populacje pasożytów są złożone 258
Pasożyty często wykazują skupiskowe rozmieszczenie u żywicieli 260
Zarówno czynniki niezależne, jak i zależne od zagęszczenia wpływają na liczebność populacji pasożytów 262
Konkurencja wewnątrzgatunkowa może regulować liczebność populacji pasożytów na rozmaite sposoby
6.3. EKOLOGIA ZGRUPOWAŃ PASOŻYTÓW
Bogactwo gatunkowe zgrupowań pasożytów różni się między gatunkami żywicieli
Gatunki pasożytów w podzgrupowaniu wchodzą ze sobą w interakcje o charakterze zarówno negatywnym, jak i pozytywnym 271
Pasożyty człowieka charakteryzują się specyficzną ekologią zgrupowań 277 Ekologia zgrupowań pasożytów odsłania tajemnice powoli, jednak postęp jest nieunikniony
6.4. ROLA PASOŻYTÓW W SIECIACH TROFICZNYCH I EKOSYSTEMACH 281
Pasożyty mogą stanowić źródło pokarmu dla innych organizmów 283
6.5. GLOBALNE WZORCE RÓŻNORODNOŚCI
6.6. ODDZIAŁYWANIE PASOŻYTA NA EKOLOGIĘ ŻYWICIELA 289
Żywiciele starają się zarówno unikać zarażenia, jak i aktywnie eliminować pasożyty, jeśli już
dojdzie do zarażenia
W celu złagodzenia przebiegu infekcji pasożytniczych żywiciele próbują leczyć się sami
Wpływ pasożytów na migracje żywicieli
Pasożyty a regulacja populacji żywicieli… ale przykładów jest niewiele
Wpływ pasożytów na konkurencję między
żywicielami
Pasożyty mogą manipulować żywicielami
290
292
294
296
298
między innymi przez oddziaływanie na ryzyko drapieżnictwa 299
Inne aspekty ekologiczne sprzyjające manipulacji żywicielem przez pasożyta
6.7.
6.8. METABOLICZNA TEORIA EKOLOGII, PASOŻYTY I… ZMIANA
303
6.9. EPIDEMIOLOGIA I JEJ POWIĄZANIA Z EKOLOGIĄ 310
Modelowanie jest nieocenionym narzędziem w badaniach chorób zakaźnych
Do mikropasożytów stosuje się podstawowe podejścia modelowe, szacując wielkość populacji i wyjaśniając mechanizmy transmisji
Modele populacji i transmisji makropasożytów zakładają monitorowanie liczby poszczególnych pasożytów
Uwzględnienie wektorów w złożonych cyklach rozwojowych pasożytów znacząco komplikuje konstrukcję modeli
311
312
314
316
Nowoczesne metody modelowania dynamiki populacji pasożytów, ich rozmieszczenia oraz oceny ryzyka i kosztów pasożytnictwa 317
Mikroewolucja pasożytów jest coraz częściej badana za pomocą nowoczesnych narzędzi 330
Złożoność struktury populacji wpływa na
Efektywna wielkość populacji, Ne, wpływa na ewolucję pasożytów 332
Sposób reprodukcji pasożytów wpływa na zmiany mikroewolucyjne 333
Stabilność środowiska żywiciela wpływa na mikroewolucję pasożyta 337
Mobilność pasożytów wpływa na ich ewolucję, na co wskazują wszy ptaków 337
Mobilność żywiciela wywiera silny wpływ na mikroewolucyjną zmianę pasożyta 338
Cykl rozwojowy pasożyta również wpływa na potencjał zmian ewolucyjnych 341
7.2. KOEWOLUCJA UKŁADU PASOŻYT–ŻYWICIEL 343
Pasożyty i żywiciele wzajemnie wpływają na swoją ewolucję 343
Pasożyty i żywiciele prowadzą wyścig zbrojeń 344
W układzie pasożyt–żywiciel przewaga może wynikać z występowania w niewielkiej liczbie 346
Stopień, w jakim pasożyty i żywiciele dostosowują się wzajemnie do siebie w danym środowisku, zależy od szczególnych okoliczności 347
Postrzeganie dynamiki koewolucji między pasożytami a żywicielami ulega zmianie 348
7.3. EWOLUCJA WIRULENCJI 350
Wirulencja osiąga kolejne fazy w poszczególnych układach pasożyt–żywiciel 351
Sposób transmisji wpływa na wirulencję 352
Inne czynniki mogące wpływać na poziom wirulencji 354
7.4. MAKROEWOLUCJA W PARAZYTOLOGII 356
Nowe gatunki pasożytów mogą powstawać co najmniej na trzy sposoby 358
Można oczekiwać różnych wyników, gdy pasożyty lub ich żywiciele ulegają dywersyfikacji 361
Co sugerują dowody na temat specjacji pasożytów? 362
Czy specjacja sympatryczna pojawia się u pasożytów? 364
Radiacja pasożytów 367 Pasożyty wymierają, czasami razem ze swoimi żywicielami 369
Jak hybrydyzacja pasożytów może wpłynąć na ich biologię i… strategię zwalczania 371
Wzorce makroewolucyjne wśród pasożytów nie zostały jeszcze wyjaśnione 372
7.5. WYBRANE TYPOWE ASPEKTY EWOLUCJI
PASOŻYTÓW 375
Organizmy wielokrotnie wykształcały pasożytnictwo na więcej niż jeden sposób 375
Niektóre pasożyty pochodzą od żywicieli 378 Selekcja może sprzyjać ewolucji złożonych cyklów rozwojowych pasożytów
379 Czasami złożone cykle rozwojowe są wtórnie upraszczane
Pasożyty często mają uproszczone ciało lub zoptymalizowane genomy, ale jednocześnie dysponują innymi zdolnościami, których nie obserwuje się u organizmów wolno żyjących
7.6. WPŁYW PASOŻYTÓW NA EWOLUCJĘ ŻYWICIELA
Pasożyty selekcjonują zmiany genetyczne i różnorodność genetyczną u żywicieli
Pasożyty wpływają na ewolucję genów MHC żywiciela
Pasożyty wpływają na wybór partnerów przez żywicieli
Pasożyty mogą ułatwiać specjację żywicieli
Czy zakażenie może bezpośrednio powodować specjację?
Przyjmuje się, że pasożyty sprzyjają ewolucji rozmnażania płciowego u żywicieli
381
382
384
384
387
391
395
398
399
Pasożyty mogą powodować wymieranie gatunków żywicielskich 401
8 PASOŻYTY I BIOLOGIA
8.1. TEORIE NA TEMAT PASOŻYTÓW I BIOLOGII
KONSERWATORSKIEJ
Teoria przewiduje, że pasożyty nie wytępią żywicieli, ale nie zawsze tak jest
Trwałe formy inwazyjne pasożytów mogą również sprzyjać wymieraniu populacji żywicieli
411
412
413
Obecność gatunku żywiciela tolerującego pasożyta może stanowić zagrożenie dla gatunku podatnego 414
8.2. WPŁYW PASOŻYTÓW NA DZIAŁANIA MAJĄCE NA CELU OCHRONĘ ŻYWICIELI 415
Pasożyty mogą powodować wymieranie gatunków żywicieli 415
Pasożyty działają wspólnie z innymi czynnikami stresogennymi, wpływając na organizmy żywicielskie
Wpływ pasożytnictwa może ulec zmianie, gdy żywiciele występują w małych, rozdrobnionych populacjach
417
419
Pasożyty mają silny wpływ na żywicieli o ograniczonej zmienności genetycznej 421
Populacje żywicieli żyjące w niewoli są szczególnie podatne na zarażenie pasożytami 424
Pasożyty przenoszą się z licznie występujących gatunków żywicieli na rzadkie gatunki pokrewne, w tym z ludzi na małpy człekokształtne 425
Rolnictwo może stwarzać zagrożenie związane z pasożytami dla dzikich gatunków żywicieli 427
Pasożyty ikonicznego gatunku – pandy wielkiej – wskazują na potrzebę pogłębienia naszej wiedzy 428
8.3. ZAGROŻENIA WYNIKAJĄCE Z INTRODUKCJI
GATUNKÓW 429
Pasożyty mogą zostać introdukowane z żywicielami i powodować efekt rozlania 430
Introdukowane gatunki żywicielskie mogą sprzyjać rozwojowi rodzimych pasożytów i powodować efekt rozlania zwrotnego 435
Zdarza się, że introdukowane organizmy niebędące żywicielami mogą wpływać na transmisję rodzimych pasożytów 437 Żywiciele inwazyjni mogą odnieść korzyści, pozostawiając naturalnych wrogów, takich jak pasożyty, w miejscu ich pierwotnego bytowania 438
Pasożyty przenoszone przez inwazyjnych żywicieli mogą sprzyjać ich ekspansji – hipoteza nowej broni 440
Inwazyjne organizmy żywicielskie mogą być potencjalnie zwalczane przez pasożyty pochodzące z ich pierwotnego obszaru występowania 442
Introdukcja pasożytów lub żywicieli często kończy się niepowodzeniem 443
Czy może dojść do załamania inwazyjnego? 443
8.4. PASOŻYTY JAKO WSKAŹNIKI ZDROWIA ŚRODOWISKOWEGO 445
Pasożyty mogą pomóc w monitorowaniu integralności ekosystemów 445
Parazytologia środowiskowa – stosunkowo nowe podejście do badania pasożytów 446
Kiedy pojawienie się pasożytów sygnalizuje zanieczyszczenie środowiska 448
8.5. PASOŻYTY JAKO NARZĘDZIA SŁUŻĄCE OCHRONIE RÓŻNORODNOŚCI BIOLOGICZNEJ ŻYWICIELA 449
Pasożyty mogą stanowić źródło informacji istotnych dla ochrony ich żywicieli 449
8.6. POTRZEBA ZACHOWANIA RÓŻNORODNOŚCI
PASOŻYTÓW 451
Pasożyty odgrywają kluczową rolę w utrzymaniu zdrowia ekosystemów 451
Pasożyty są motorem napędowym różnorodności biologicznej 452
Pasożyty są źródłem nowych rozwiązań farmakologicznych i terapeutycznych 453
Pasożyty mogą dostarczyć zaskakującej podstawowej wiedzy na temat biologii żywicieli 454
Utrata różnorodności pasożytów 455
Translokacja, kointrodukcja, renaturyzacja, a nawet przywracanie wymarłych gatunków pasożytów 460
9 WYZWANIA W ZAKRESIE ZWALCZANIA
9.1. STRATEGIE OGRANICZANIA TRANSMISJI
PASOŻYTÓW
Różnorodne sposoby ograniczania transmisji pasożytów 473
Pasożyty przenoszone drogą troficzną mogą być skutecznie zwalczane przez zapewnienie bezpieczeństwa żywności 474
Właściwe warunki sanitarne kluczem do zwalczania pasożytów przenoszonych drogą fekalno-oralną 476
Pozostałe czynniki wpływające na powodzenie działań zwalczających pasożyty 477
Zwalczanie chorób przenoszonych przez wektory koncentruje się na ograniczeniu kontaktu człowieka z wektorem 479
Odkrycie DDT zrewolucjonizowało strategie zwalczania wektorów 479
Nowsze insektycydy stanowią alternatywę dla DDT 481
Transmisję pasożytów przenoszonych przez wektory można ograniczyć przez modyfikację środowiska 482
Kontrola biologiczna umożliwia tanie i zrównoważone zwalczanie pasożytów 484
Wektory mogą być kontrolowane przez manipulację ich mikrobioty 486
Metoda sterylnych samców została wykorzystana do ograniczania lub wyeliminowania populacji wektorów 487
Wektory transgeniczne dają nadzieję na zmniejszenie pojemności wektorów 489
Napęd genowy może pozwolić transgenom na szybkie rozprzestrzenianie się w populacji wektorów 491
9.2. LEKI PRZECIWPASOŻYTNICZE
Wybór najlepszego leku przeciwpasożytniczego
zależy od wielu czynników i różni się w zależności od konkretnej sytuacji
W leczeniu i profilaktyce stosuje się rozmaite leki
Leki mogą być stosowane w celu leczenia lub ochrony zarówno poszczególnych osób, jak i całej populacji
Niektóre leki są aktywne tylko przeciwko pasożytom na określonym etapie życia
Stosowanie leków przeciwpasożytniczych może prowadzić do rozwoju oporności
Zmiany genetyczne mogą powodować oporność na różne sposoby
Oporność stanowi poważne wyzwanie dla programów zwalczania chorób
492
494
494
496
496
498
500
502
Oporności na leki można skutecznie zapobiegać lub ją cofnąć 503
Obawy związane z opornością podkreślają pilną potrzebę opracowania nowych leków przeciwpasożytniczych 506
Potrzebne są również nowe leki, aby zastąpić starsze, bardziej toksyczne preparaty 507
Kwestie ekonomiczne mogą wpływać na tempo opracowywania nowych leków
9.3. SZCZEPIONKI
508
509
Szczepionki muszą być tanie i bezpieczne, a jednocześnie wywoływać długotrwałą odporność 511
Opracowanie szczepionki przeciwko pasożytom eukariotycznym jest szczególnie problematyczne 512
Szczepionki dzieli się na kilka rodzajów 512
Skuteczna szczepionka przeciwko malarii jest przedmiotem intensywnych badań 514
Szczepionki skierowane przeciwko różnym etapom cyklu rozwojowego mogą dawać zróżnicowane korzyści 515
Kandydaci na szczepionki znajdują się na różnych etapach opracowania 516
Istnieje kilka szczepionek przeciwko pasożytom eukariotycznym przeznaczonych do stosowania w weterynarii 519
Trwają badania nad szczepionkami przeciwko helmintom 519
PODSUMOWANIE
ROZDZIAŁ 10 PRZYSZŁOŚĆ PARAZYTOLOGII 529
10.1. NASZ ŚWIAT W PRZYSZŁOŚCI 530
10.2. PRZYSZŁE WYZWANIA DLA PARAZYTOLOGÓW 532
Wciąż ogromna różnorodność biologiczna pasożytów wymaga opisu i zachowania, zanim zupełnie zniknie 532
Jak zmienią się cykle rozwojowe pasożytów w odpowiedzi na nowe wyzwania 535
Aby zrozumieć skutki nadchodzących zmian, konieczne jest spojrzenie z perspektywy ekologów i biologów ewolucyjnych 537
Zmiany klimatyczne będą mieć wpływ na pasożyty, lecz wciąż nie wiadomo, jak się to objawi 540
10.3. ZWALCZANIE PASOŻYTÓW W PRZYSZŁOŚCI 545
Pasożyty człowieka budzące największe obawy –zmieniające spektrum zagrożeń? 545
Więcej badań „-omowych” nad pasożytami 547
Szczegółowe dane dotyczące rodzaju cząsteczek pasożyta i żywiciela wchodzących ze sobą w interakcje są niezbędne do wyjaśnienia wielu podstawowych aspektów pasożytnictwa 547
Lepsze zrozumienie procesów odpornościowych powinno umożliwić opracowanie nowych szczepionek przeciw pasożytom, jednak dotychczas to pasożyty wygrywają 549
Chemioterapia przeciwpasożytnicza stanowi wyścig zbrojeń między ludzką pomysłowością a zdolnością pasożytów do ewolucji 551
Zintegrowane działania, wynikające z dogłębnej znajomości biologii pasożytów, mogą stanowić najlepszą perspektywę dla ich zrównoważonego zwalczania 555
Ambitne nowe cele w zakresie eradykacji, eliminacji i kontroli zaniedbanych chorób tropikalnych 557
W przyszłości konieczne będzie udoskonalenie metod wykrywania i diagnozowania zarażeń pasożytniczych o niskiej intensywności i transmisji 560
Poprawa warunków życia i dostępu do edukacji dodatkowo ograniczy transmisję pasożytów w środowisku 562
Czym jest wektor? Opinie są podzielone, a jeśli lubisz precyzyjne określenia, zapoznaj się ze szczegółowym opisem na temat tego terminu i jego różnych zastosowań w biologii chorób zakaźnych: https:// royalsocietypublishing.org/doi/ pdf/10.1098/rstb.2016.0085
żywicieli krew, która stanowi jego pożywienie. W kolejnych częściach książki, szczególnie w rozdziale 3, powrócimy do tematu wektorów. Na tym etapie warto jedynie zaznaczyć, że możemy wyróżnić dwie główne kategorie wektorów: mechaniczne i biologiczne. Wektor mechaniczny przenosi pasożyta z jednego żywiciela do drugiego, przy czym pasożyt nie rozwija się ani nie rozmnaża w wektorze. Przykładem jest mucha końska, która przenosi pierwotniaki Trypanosoma evansi z jednego konia na inne. Pasożyty obecne w świeżej krwi jedynie zanieczyszczają aparat gębowy muchy. Natomiast wektor biologiczny to organizm, w którym pasożyt rozwija się lub mnoży albo podlega obu tym procesom, zanim zostanie skutecznie przeniesiony do nowego żywiciela. Warto zauważyć, że termin „wektor” ma również inne, powszechne, ale zupełnie odmienne znaczenie w biologii: odnosi się do czynnika, takiego jak plazmid lub wirus, używanego do przenoszenia genu lub genów z jednego miejsca na drugie. Choć takie wektory są istotnymi narzędziami eksperymentalnymi w parazytologii, w kontekście tej książki termin ten odnosi się przede wszystkim do organizmów takich jak komary, przenoszących malarię, filariozę lub podobne czynniki zakaźne. Parazytolodzy o zamiłowaniach matematycznych mogą mieć własną, całkowicie odmienną definicję wektora.
1.3. DOCENIENIE PASOŻYTNICTWA W PRZYRODZIE
Pasożytnictwo to jedna z form symbiozy Symbioza odnosi się do bliskiego związku między organizmami dwóch różnych gatunków. Pasożytnictwo to tylko jedna kategoria związków symbiotycznych. W dzisiejszym, powszechnym ujęciu, symbioza obejmuje różnorodne formy bliskich relacji międzygatunkowych (rycina 1.11). Wśród nich wyróżniamy forezę (głównie związaną
SYMBIOZA
Brak interakcji tro cznej, głównie w transporcie
Korzyści dla jednego par tnera, brak zauważalnego wpływu na drugiego
FOREZAKOMENSALIZM
Jeden par tner odnosi korzyści, drugi ponosi szkodę
Pewne zaangażowanie obu partnerów
Obydwaj partnerz y odnoszą korz yści
MUTUALIZM
Rycina 1.11. Schemat różnych kategorii związków symbiotycznych. Jak wskazano w tekście, często subtelne zmiany sprawiają, że różnice między nawet pozornie wyraźnymi zjawiskami, takimi jak mutualizm i pasożytnictwo, są bardziej złożone i interesujące, niż mogłoby się początkowo wydawać (© Eric Loker i Bruce Hofkin)
Jeden par tner odnosi korzyści, drugi zwyk le ginie
Jeden par tner regularnie eksploatuje zasoby drugiego
DRAPIEŻNIC TWO, PARAZYTOIDY PASOŻYTNIC TWO SPOŁECZNE, KLEPTOPASOŻYTNIC TWO
Jeden par tner odnosi korzyści, może się pożywiać na k ilku żywicielach
MIKRODRAPIEŻNIK
Jeden partner odnosi korzyści, drugi zwyk le nie ginie
Jeden par tner odnosi korzyści, żyje w lub na jednym żywicielu na każdym etapie cyk lu rozwojowego
PASOŻYT
z transportem), relacje, które przynoszą korzyści jednemu partnerowi bez zauważalnego wpływu na drugi (komensalizm), a także interakcje wzajemnie korzystne (mutualizm), aż do po takie, które szkodzą jednemu partnerowi kosztem drugiego (na przykład pasożytnictwo lub drapieżnictwo).
Foreza to zjawisko, w którym jeden organizm wykorzystuje drugi jako środek transportu, nie wchodząc z nim w interakcje fizjologiczne. Wiele zaleszczotek oraz wolno żyjących roztoczy korzysta z transportu na owadach, jak pokazano na rycinie 1.12A. Roztocza mogą być przenoszone na padlinę, gdzie żywią się jajami oraz larwami much również tam żerujących. Zadziwiający przykład forezy występuje, gdy samica gza ludzkiego Dermatobia hominis (rycina 1.12B) łapie w powietrzu samice komarów i składa na nich jaja (rycina 1.12C). Gdy komar posila się krwią, wylęgające się z jaj larwy gza spadają na człowieka, a następnie aktywnie lub przez otwór pozostawiony po wkłuciu komara przechodzą pod skórę i podczas wędrówki rozwijają się w dużą larwę, tzw. guz podskórny (rycina 1.12D), często umiejscowiony na głowie. Ostatecznie duża larwa (ostatnia postać larwalna) spada na ziemię, gdzie przeobraża się w poczwarkę, z której osłon wylatuje dorosły giez. Samica gza ludzkiego, duża i odstraszająca, wykorzystuje komara jako środek transportu dla swoich jaj, unikając jednocześnie niebezpiecznego zbliżenia się do żywiciela – człowieka i zostawiając tę niewdzięczną pracę komarowi. Wielu studentów powraca z wiosennych wakacji w Ameryce Środkowej z pamiątką w postaci larwy gza ludzkiego.
Wśród różnorodnych zjawisk symbiotycznych istnieje wiele, które można uznać za eksploatacyjne. W takich relacjach jeden uczestnik (eksploatujący) odnosi korzyści (+), podczas gdy drugi (eksploatowany) ponosi straty (−). Pasożyt wykorzystujący żywiciela jest doskonałym przykładem tego zjawiska. W innych przypadkach gatunek eksploatujący wykorzystuje eksploatowany, jego produkty lub zasoby, aby unikać
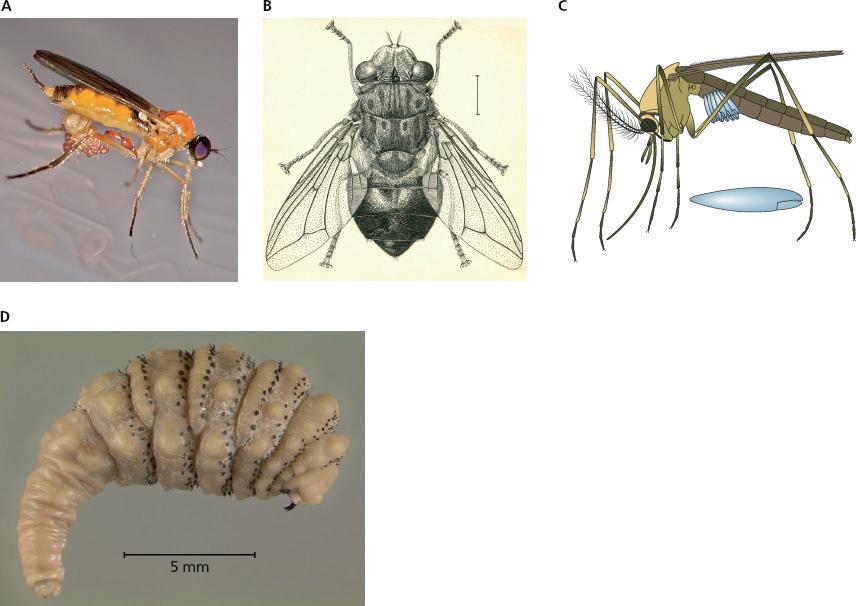
Rycina 1.12. Przykłady forezy. (A) Foretyczna zaleszczotka Lamprochernes sp. przyczepiona do odnóża muchy Leptopeza flavipes (Hybotidae). (B) Samica gza ludzkiego Dermatobia hominis. (C) Skupisko jaj D. hominis na odwłoku komara, który w tym przypadku jest żywicielem foretycznym. (D) Duża larwa D. hominis ((A) dzięki uprzejmości Sarefo, opublikowane na licencji CC By-SA 4.0; (B i C) dzięki uprzejmości A Cushmana, Departament Rolnictwa USA; (D) dzięki uprzejmości Lyle’a Bussa, Uniwersytet Florydy)
W jaki sposób wolno żyjące wrotki mogły stopniowo ewoluować w kolcogłowy, które mają złożony cykl rozwojowy, a ich dorosłe osobniki bytują jako pasożyty jelitowe u kręgowców? Zobacz https://www.ncbi.nlm.nih.gov/ pmc/articles/PMC5266366/, aby zapoznać się z jednym z możliwych scenariuszy.
Drugi przykład (patrz rycina 2.21B) ujawnia zaskakującą zależność między grupą wyłącznie pasożytniczą, Acanthocephala, czyli kolcogłowami, a głównie wolno żyjącym typem Rotifera (wrotki). Dorosłe kolcogłowy wykorzystują kolczaste ryjki do wbicia się w ścianę jelita żywiciela, będącego kręgowcem, a reszta ich pozbawionego jelit ciała wisi luźno w świetle jelita żywiciela. Ich larwy są zazwyczaj otorbione w stawonogach. Kolcogłowy były kiedyś klasyfikowane w odrębnym typie, Acanthocephala, ale obecnie są często uważane za wysoce zmodyfikowane wrotki. I znów wydaje się, że długa ewolucyjna droga wiedzie od wolno żyjącego w środowisku wodnym wrotka do endopasożyta kręgowców, który nie ma żadnej pozostałości własnego jelita.
Trzecią dużą grupą pasożytów, której pozycja w filogenezie zwierząt nie została jeszcze jednoznacznie określona, są myksosporidiowce (Myxozoa). Myxozoa to grupa zwierząt wyłącznie pasożytniczych zasiedlających pierścienice lub mszywioły jako żywicieli ostatecznych albo kręgowce, zwłaszcza ryby, jako żywicieli pośrednich. Niektóre, takie jak Myxobolus cerebralis, powodują poważne choroby ryb (rycina 2.22). Chociaż kiedyś uważano je za jednokomórkowe protisty lub odrębną grupę wczesnych zwierząt dwubocznie symetrycznych, badania molekularne wyjaśniły ich status jako niezwykłych parzydełkowców z typu obejmującego także meduzy i koralowce. Wynik ten pomaga wyjaśnić sugestywne podobieństwo między nematocystami parzydełkowców a torebkami biegunowymi spor myksosporidiowców, które od dawna stanowiły zagadkę dla zoologów (rycina 2.22). Myxozoa pozostają intrygujące, ponieważ co najmniej jeden gatunek, Henneguya salminicola, nie ma genomu mitochondrialnego ani funkcjonalnego metabolizmu tlenowego, co czyni go pierwszym zwierzęciem, u którego jednoznacznie wykazano tę cechę. Oprócz uproszczenia anatomicznego myksosporidiowce mają jedne z najmniejszych znanych genomów wśród zwierząt. Innym zaskakującym i prawdopodobnie zbliżonym eksperymentem dotyczącym strategii pasożytów jest fakt, że oocyty jesiotrów są często zarażane przez dziwaczne zwierzęta parzydełkowe zwane Polypodium, które wytwarzają nawet formy podobne do meduz w słodkowodnym etapie cyklu rozwojowego.
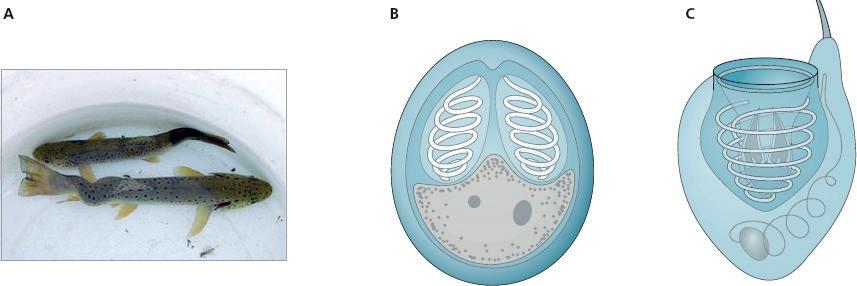
Rycina 2.22. Myxozoa, na przykładzie Myxobolus cerebralis, organizmu wywołującego kołowaciznę u ryb łososiowatych (A) Pstrąg cierpiący na kołowaciznę. Zwróć uwagę na zdeformowany kręgosłup i czerniejący ogon. (B) Przykład myksospory z zawiniętymi nitkami biegunowymi wewnątrz. Są one wytłaczane i zapewniają przyczepność do komórki żywiciela, która ma zostać zarażona. (C) Przykład nematocysty parzydełkowca pokazujący zwiniętą rurkę wewnątrz, która jest uważana za homologiczną do nitek biegunowych myksosporidiowca ((B) z Eiras J.C., Malta J.C.O., Varella A.M.B., Pavanelli G.C. (2005), Mem Inst Oswaldo Cruz 100:245–247, zezwolenie udzielone na podstawie licencji Creative Commons typu By; (C) dzięki uprzejmości Ivy Livingstone)
Badania nad różnorodnością ujawniają, w jaki sposób poszczególne pasożyty nabywały zdolności zarażania ludzi
Zaletą dokładnego zrozumienia relacji filogenetycznych linii żywiciela i związanych z nim pasożytów jest to, że zyskujemy wgląd, kiedy i w jaki sposób żywiciele nabyli pasożyty. Dotyczy to z pewnością również pasożytów ludzkich, co pokazują dwa poniższe przykłady. Pierwszy dotyczy wszy (Anoplura), które są naszymi pasożytami. Wszystkie wszy są krwiopijnymi pasożytami zewnętrznymi ssaków. Ludzie to wyjątek w porównaniu z naszymi najbliższymi krewnymi, ponieważ są żywicielami dwóch gatunków wszy, każdego z innego rodzaju: Pediculus humanus i Pthirus pubis. Pierwszy zasługuje na szczególną uwagę, ponieważ jest wektorem bakterii wywołującej tyfus plamisty (Rickettsia prowazekii) oraz innych patogenów. Natomiast szympansy i goryle są nosicielami tylko jednego gatunku wszy (odpowiednio Pediculus schaeffi i Pthirus gorillae). Wiele badań filogenetycznych pozwoliło ustalić zarówno wzorce pokrewieństwa między naczelnymi, w tym małpami człekokształtnymi, jak i między ich wszami (rycina 2.23A). Oszacowano w nich czas rozdzielenia się tych grup na podstawie stopnia zmian sekwencji występujących zarówno u wszy, jak i naczelnych, stosując hipotezę zegara molekularnego Podstawową ideą hipotezy zegara molekularnego jest to, że sekwencje DNA zmieniają się w wyniku mutacji w stałym tempie, tak że stopień rozbieżności w sekwencji konkretnego genu między dwoma pokrewnymi gatunkami może być wykorzystany do datowania momentu, w którym nastąpiło ich rozdzielenie. Chociaż hipoteza zegara jest nieco kontrowersyjna, a tempo zmian substytucji nukleotydów różni się w różnych
Pasożyt (A) (B)
Pediculus schae
Pediculus humanus
Pthirus pubis
Pthirus gorillae
Pedicinus
Farenholtzia
Zmiana ż ywiciela
Duplik acja gatunku pasoż yta
Wyginięcie pasożyta
Żywiciel
Człowiek
Gor yl
Małpy Starego Świata
Gr yzoń
Rycina 2.23. Pochodzenie ludzi i wszy (A) Drzewa filogenetyczne zarówno dla naczelnych (z naciskiem na ludzi i naszych najbliższych krewnych), jak i ich wszy Anoplura. (B) Drzewo to przedstawia hipotezę dotyczącą tego, w jaki sposób ludzie nabyli dwa gatunki wszy ((A, B) zdjęcie z Pair of lice lost or parasites regained: the evolutionary history of anthropoid primate lice, BMC Biol 5:1–11. Na podstawie Reed et al. (2007), BMC Biol 5:1–11 wykorzystane zgodnie z warunkami licencji Creative Commons Attribution License 2.0)
Pediculus humanus
Pthirus pubis
Pediculus schae
Pthirus gorillae
Pedicinus sp.
Człowiek
Sz ympans
Gor yl
Małpy Starego Świata
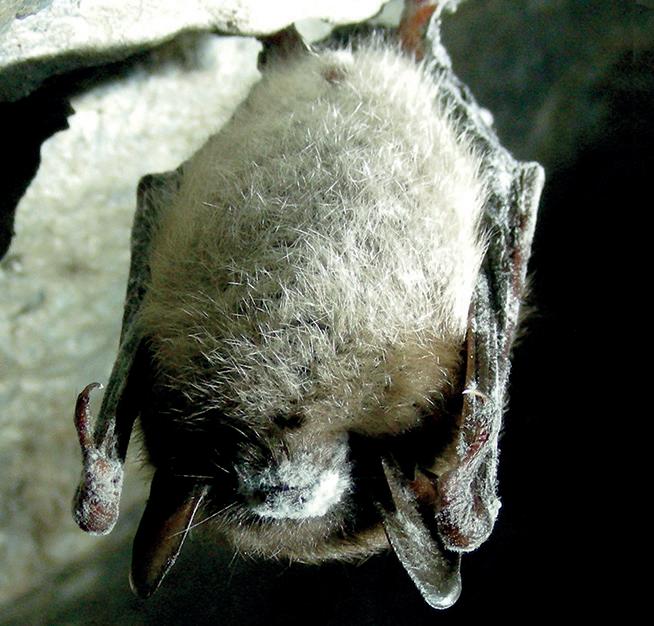
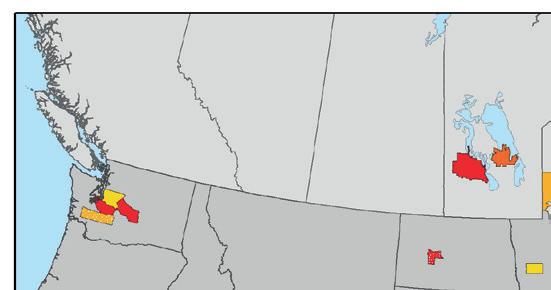
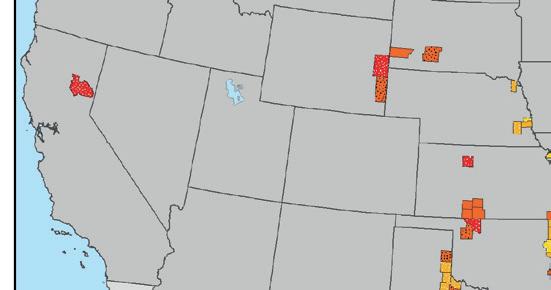
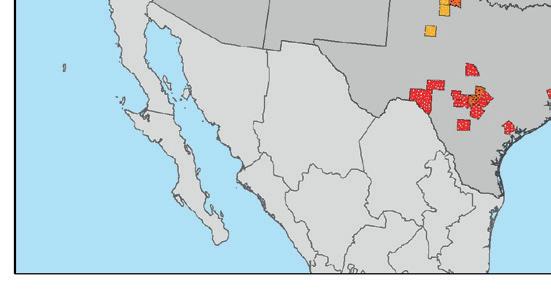
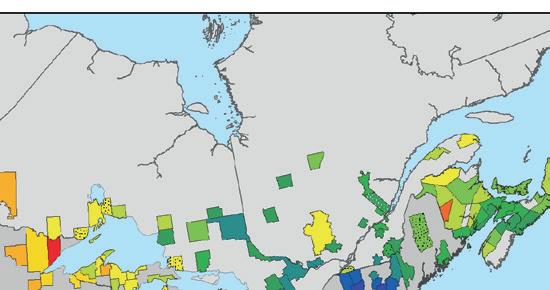
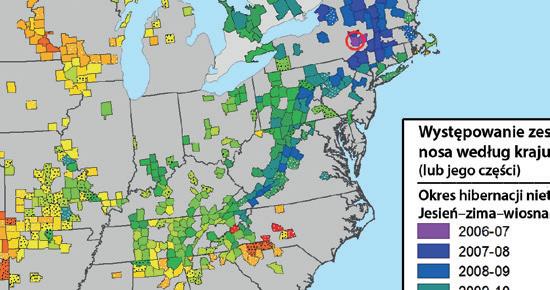
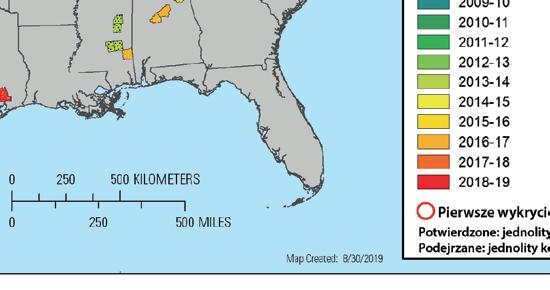
Rycina 2. Pseudogymnoascus destructans, kolejna szybko rozprzestrzeniająca się choroba grzybicza budząca niepokój. (A) Zespół białego nosa wywołany przez P. destructans u nocka amerykańskiego Myotis lucifugus. (B) Mapa Ameryki Północnej przedstawiająca rozmieszczenie P. destructans w sierpniu 2019 roku ((A) dzięki uprzejmości Marvina Moriarty’ego, US Fish and Wildlife Service)
gatunków płazów (patrz rozdział 7).
Skład bakterii i innych grzybów, które naturalnie kolonizują skórę płazów, może odgrywać istotną rolę w ograniczaniu inwazji Bd.
Chociaż około 12% gatunków płazów dotkniętych chorobą wykazuje pewne oznaki poprawy, u kolejnych 39% spadek liczebności nadal postępuje.
Wydaje się prawdopodobne, że spadek różnorodności płazów będzie trwał, częściowo dlatego, że w niektórych regionach epidemie mogą jeszcze nie wystąpić. Gatunki o mniejszych i genetycznie jednorodnych populacjach są szczególnie podatne na te zagrożenia.
Drugi gatunek grzyba budzący niepokój, Pseudogymnoascus destructans, pojawił się w 2006 roku, gdy u hibernujących nietoperzy w jaskiniach stanu Nowy Jork stwierdzono obecność grzyba rosnącego na pysku (rycina 2), uszach i błonach skrzydłowych, stąd nazwa –zespół białego nosa (ZBN). Nietoperze zarażają się podczas hibernacji, kiedy temperatura ich ciała spada do poziomu sprzyjającego rozwojowi grzyba. P. destructans preferuje niskie temperatury, często panujące w miejscach hibernacji nietoperzy. Nie rozwija się w temperaturze powyżej 20°C. Uważa się, że inwazje zakłócają stan letargu nietoperzy, powodując częstsze wybudzanie, podwyższając temperaturę ich ciała
i spalając zapasy tłuszczu potrzebne do zakończenia hibernacji. W konsekwencji zwierzęta stają się wychudzone, odwodnione i giną. P. destructans jest pasożytem oportunistycznym i może przetrwać w jaskiniach i innych środowiskach jako saprotrof żywiący się martwą lub rozkładającą się materią organiczną. Grzyby pokrewne są powszechne w glebach ekosystemów umiarkowanych i wysokich szerokości geograficznych.
Dlaczego nietoperze, podobnie jak płazy, w Ameryce Północnej nagle zaczęły ulegać inwazjom grzybiczym? Uważa się, że P. destructans pochodzi z Eurazji. Północnoamerykańskie nietoperze, którym eksperymentalnie wszczepiono izolaty P. destructans pochodzące z Europy, zapadają na ZBN, podczas gdy nietoperze europejskie nie, co sugeruje, że te ostatnie mają długą historię kontaktu z grzybem. Izolaty grzyba z Europy są zróżnicowane genetycznie, podczas gdy izolaty północnoamerykańskie są klonalne, co sugeruje jedno źródło pochodzenia, a następnie rozprzestrzenienie się (rycina 2B). Do rozprzestrzenienia się doszło przez naturalne loty lokalne lub migracyjne nietoperzy, ale przyczynić się do tego mogły również zanieczyszczone obuwie lub sprzęt związany z eksploracją jaskiń. Do 2019 roku dotkniętych chorobą było 13 gatunków nietoperzy z Ameryki Północnej, w tym 2 gatunki zagrożone
wyginięciem oraz 1 gatunek narażony na wyginięcie. Miliony nietoperzy z Ameryki Północnej należących do kilku gatunków padły z powodu ZBN, co miało znaczący wpływ na usługi ekosystemowe świadczone przez nietoperze, w tym na konsumpcję owadów uprawnych lub przenoszących choroby.
Niektóre najnowsze badania dotyczące szczególnie dotkniętego tym problemem nocka amerykańskiego, Myotis lucifugus (rycina 2A), dają nadzieję, sugerując, że nietoperze zaczynają wykazywać reakcje obronne wobec tego zagrożenia. Wykazują tendencję do rzadszego wybudzania się ze stanu letargu i utrzymywania pewnych rezerw tłuszczu przez cały okres hibernacji. Podobnie jak w przypadku Bd ważny może być skład mikroflory żyjącej na skórze hibernujących nietoperzy, a obecność niektórych rodzajów bakterii wiąże się z ograniczeniem wzrostu grzybów. Aby zapobiec dalszemu rozprzestrzenianiu się choroby w zachodniej części Ameryki Północnej oraz Ameryce Środkowej i Południowej, wprowadzono rygorystyczne protokoły, których muszą przestrzegać osoby wchodzące do jaskiń, a w niektórych przypadkach dostęp do nich może być całkowicie zabroniony. Oprócz rozprzestrzeniania się ZBN musimy być świadomi ryzyka rozprzestrzeniania się wirusa SARS-CoV-2 wśród nietoperzy.
Jakie ogólne wnioski płyną z przypadków Bd i ZBN? Po pierwsze, w obu przypadkach rolę odegrało rozszerzenie zasięgu gatunków spowodowane przez działalność człowieka. Ponadto wydaje się, że w przypadku Bd nastąpiła zmiana ewolucyjna skutkująca zwiększoną zjadliwością. Grzyby często mają szeroki zakres żywicieli (Bd może zarażać ponad 500 gatunków), a niektóre gatunki żywicieli służą jako trwałe źródła zarażenia (patrz rycina 8.4). Wreszcie grzyby mogą przetrwać jako odporne zarodniki lub prawdopodobnie jako wolno żyjące grzybnie w siedliskach bez żywicieli (patrz rycina 8.3). Kiedy pojawiają się nowi żywiciele, grzyby są gotowe do zainicjowania nowych inwazji.
Mykolodzy często alarmują, że grzyby są nadal w znacznym stopniu
niedostatecznie zbadane, dysponujemy stosunkowo niewielką liczbą związków chemicznych do leczenia chorób grzybiczych, a niektóre z naszych podstawowych środków leczniczych, takich jak flukonazol, zaczynają tracić skuteczność. Pojawiający się patogen grzybiczy Candida auris jest odporny na wszystkie klasy leków przeciwgrzybiczych. Mykolodzy słusznie zadali niewygodne pytanie: „Czy następna pandemia wśród ludzi będzie spowodowana przez grzyby?”.
Bibiliografia
Almeida F. et al. (2019), The still underestimated problem of fungal diseases worldwide. Front Microbiol. 10:214, doi:10.3389/fmicb.2019.00214.
Auteri G.G., Knowles L.L. (2020), Decimated little brown bats show potential for adaptive change. Sci Rep 10:3023, doi:10.1038/s41598020-59797-4. PMC 7033193. PMID 32080246.
Introdukowany obc y żywiciel z obc ym pasożytem
Hoyt J.R., Langwi K.E., White J.P., Kaarakka H.M. et al. (2019), Field trial of a probiotic bacteria to protect bats from white-nose syndrome. Sci Rep 9:9158.
Martel A., Spitzen-van der Sluijs A., Blooi M., Bert W. et al. (2013), Batrachochytrium salamandrivorans sp. nov. causes lethal chytridiomycosis in amphibians. Proc Natl Acad Sci USA 110:15325–15329.
Scheele B.C. et al. (2019), Amphibian fungal panzootic causes catastrophic and ongoing loss of biodiversity. Science 363:1459–1463.
Stevenson L.A., Roznik E.A., Greenspan S.E., Alford R.A. & Pike D.A. (2020), Host thermoregulatory constraints predict growth of an amphibian chytrid pathogen (Batrachochytrium dendrobatidis). J Therm Biol 87:102472.
Voyles J., Woodhams D.C., Saenz V., Byrne A.Q., Perez R., Rios-Sotelo G. et al. (2018), Shifts in disease dynamics in a tropical amphibian assemblage are not due to pathogen attenuation. Science 359:1517–1519.
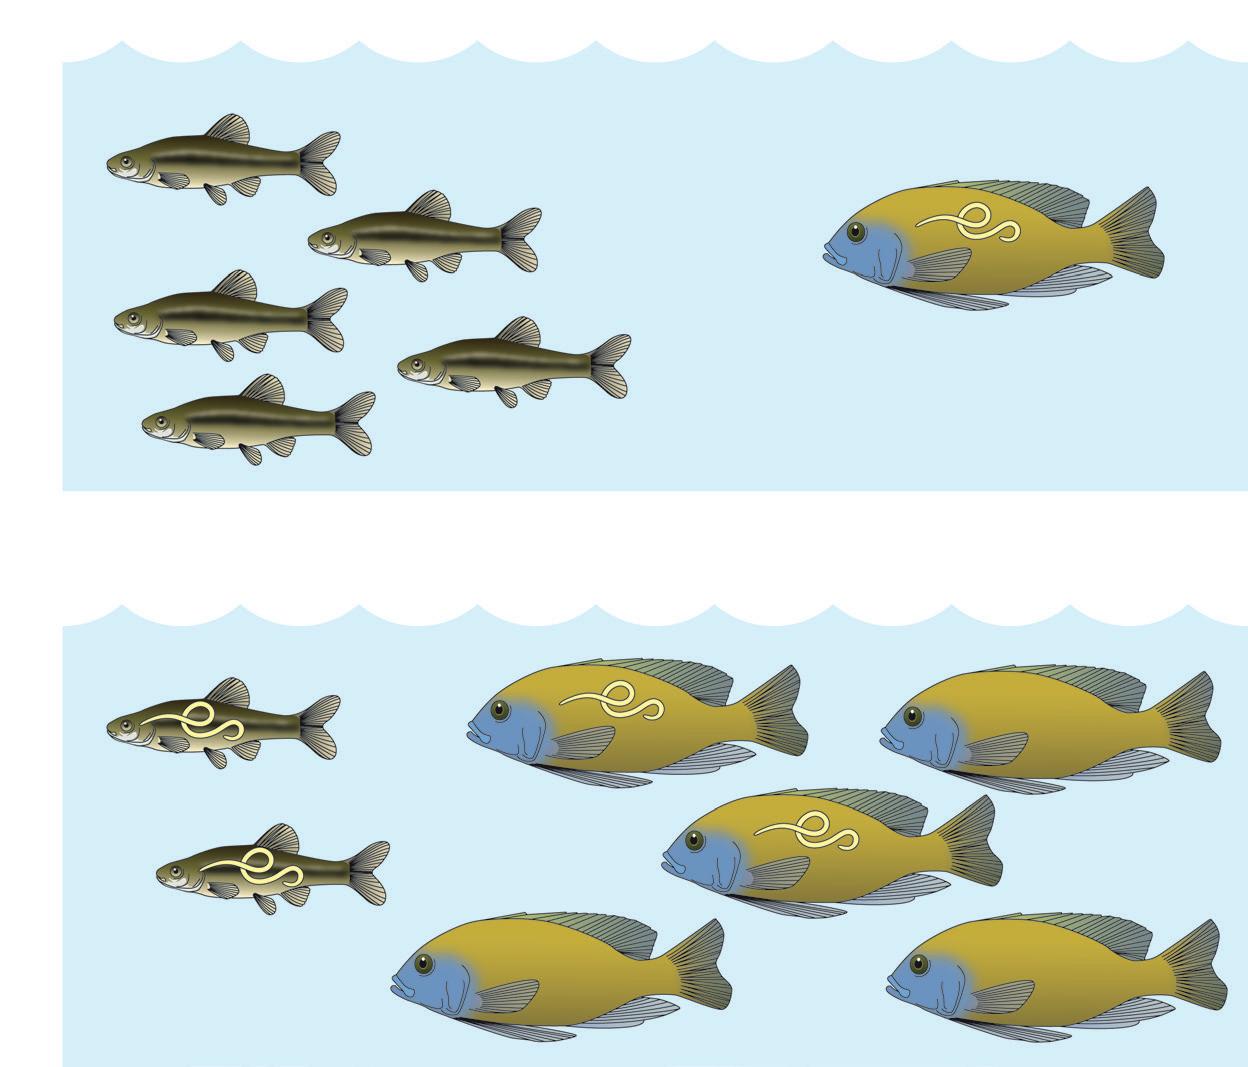
Rycina 8.16. Efekt rozlania pasożytów. Na górnym rysunku widoczny jest obcy gatunek żywiciela wraz z obcym pasożytem, który zostaje introdukowany do nowego środowiska zamieszkiwanego przez rodzimy gatunek żywiciela pozbawiony pasożyta. Jak pokazano na dolnym rysunku, obcy pasożyt rozprzestrzenia się na rodzimy gatunek żywiciela, potencjalnie osiągając w nim większą liczebność i prowadząc do spadku liczebności tego żywiciela
uważana za mniej prawdopodobną, jeśli dany pasożyt występuje rzadko u rodzimego żywiciela lub jeśli sam introdukowany żywiciel jest rzadki. Jest to bardziej prawdopodobne, jeżeli pasożyt jest generalistą, który od początku ma szeroki zakres żywicieli. Termin „efekt rozlania” jest również używany w odniesieniu do przenoszenia pasożyta z populacji żywicieli domowych lub hodowlanych do populacji żywicieli dzikich, jak opisano powyżej w przypadku przenoszenia Nosema apis z populacji trzmieli hodowlanych do populacji dzikich lub transmisji Lepeophtheirus salmonis z łososia hodowlanego do łososia dzikiego.
Nieendemiczny
Eradykowany
Endemiczny
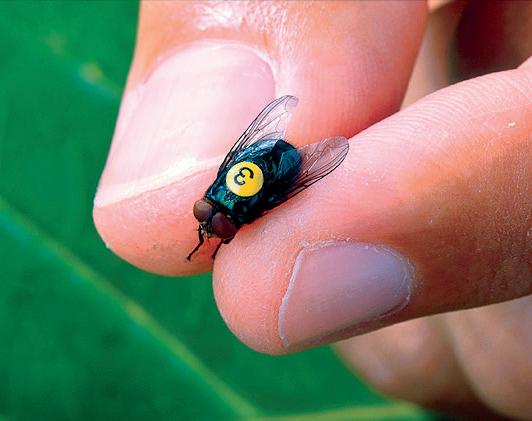
Rycina 9.13. Zwalczanie muchy śrubowej za pomocą metody sterylnych samców. (A) Dorosła mucha śrubowa (Cochliomyia hominivorax) oznaczona w ramach programu nadzoru nad tym owadem. Samice muchy składają jaja w ranach zwierząt gospodarskich i dzikich. Wyklute larwy żywią się mięsem zwierząt, powodując chorobę zwaną muszycą. (B) Zwalczanie muchy śrubowej przy użyciu metody sterylnych samców rozpoczęło się w połowie XX wieku. Mapa przedstawia lata, w których udało się skutecznie opanować tę chorobę na różnych obszarach Ameryki Północnej i Środkowej ((A) dzięki uprzejmości Agriculture Research Service, USDA. (B) Organizacja Narodów Zjednoczonych do spraw Wyżywienia i Rolnictwa, 2001)
Obce dwuniciowe RNA wprowadzone do komórki docelowej
Kompleks RNazy
Degradacja RNA
Ampli kacja zdegradowanego RNA
Formowanie krótkich regionów dwuniciowego RNA
Geny endogenne w komórce docelowej
mRNA
Pocięte mRNA
Zdegradowane mRNA
Rycina 9.14. Interferencja RNA. Los obcego dwuniciowego RNA (dsRNA) przedstawiono po lewej stronie schematu. Taki dsRNA, typowy dla infekcji wirusowych, jest rozpoznawany przez duży kompleks białkowy z aktywnością RNazy. Dwuniciowe RNA ulega degradacji do krótkich fragmentów o długości około 23 par nukleotydów. Fragmenty te mogą być czasem amplifikowane przez RNA-zależną polimerazę RNA, co umożliwia ich efektywne przenoszenie do komórek potomnych. Jeśli sekwencja obcego RNA jest podobna do sekwencji genu komórkowego, mRNA transkrybowane z tego genu również zostanie zdegradowane w ramach tego szlaku. W ten sposób ekspresja genu komórkowego może zostać wyciszona przez wprowadzenie do komórki dsRNA komplementarnego do sekwencji nukleotydowej genu
samców komarów z rodzaju Anopheles, które nie wytwarzają plemników. Wynika to z zahamowania ekspresji genu kluczowego dla tego procesu. Chociaż samce te nie produkują plemników, nadal łączą się w pary z samicami typu dzikiego, które następnie wytwarzają niezapłodnione jaja niezdolne do wyklucia.
Wektory transgeniczne dają nadzieję na zmniejszenie pojemności wektorów
Transgeneza oznacza celowe wprowadzenie egzogennego materiału genetycznego do organizmu żywego. Nowo nabyte geny, zwane transgenami, nadają organizmowi biorcy nowe cechy, które mogą być przekazywane potomstwu. Tego rodzaju inżynieria genetyczna coraz częściej jest rozważana jako metoda kontroli wektorów chorób. Jeśli dzięki niej uda się zmniejszyć zdolność wektorów do przenoszenia patogenów, istnieje nadzieja, że transgeniczne wektory zostaną uwolnione na obszarach endemicznych, co przyczyni się do ograniczenia transmisji chorób i liczby zachorowań. Metody genetyczne, zwykle stosowane łącznie z bardziej tradycyjnymi technikami zwalczania, są badane od lat 50. XX wieku. Operacyjne zastosowanie genetycznie zmodyfikowanych wektorów w celu ograniczenia transmisji chorób okazało się jednym z najtrudniejszych wyzwań w kontroli wektorów. Niemniej w ciągu ostatnich dwóch dekad nastąpił znaczący postęp w dziedzinie genomiki i proteomiki wektorów oraz w możliwościach genetycznej manipulacji wektorami istotnymi z medycznego punktu widzenia. W efekcie obiecujące wyniki uzyskane w laboratorium zaczynają się przekładać na sukcesy w warunkach terenowych, a w niektórych przypadkach stosowanie transgenicznych wektorów do zwalczania transmisji chorób jest już rzeczywistością.
Zwalczanie choroby przez wykorzystanie transgenicznych wektorów nie musi być stosowane na wszystkich obszarach transmisji patogenu. Na przykład na terenach, gdzie transmisja malarii jest na niskim lub umiarkowanym poziomie, obecnie dostępne metody są najczęściej wystarczające do osiągnięcia oczekiwanego poziomu transmisji lub nawet lokalnej eliminacji patogenu. Tam wysiłki w zakresie zwalczania mogą się skupiać na poprawie trwałości bardziej konwencjonalnych metod. Jednak nawet na niektórych obszarach z niskim poziomem transmisji wypróbowane i sprawdzone metody, takie jak stosowanie impregnowanych moskitier i ogniskowe opryskiwanie pomieszczeń, nie skutkują skutecznym zwalczaniem pasożytów. Na przykład wiele gatunków komarów z rodzaju Anopheles przebywa i żeruje na zewnątrz, a nie wewnątrz domów, co powoduje, że pewne metody zwalczania stają się znacznie mniej skuteczne. W takich warunkach rola transgenicznych komarów może być wciąż uzasadniona. Szczególnie w regionach o wysokiej transmisji chorób entuzjazm wobec nowych interwencji genetycznych jest bardzo duży. Strategie zarówno redukcji, jak i wymiany mogą, przynajmniej teoretycznie, korzystać z tej technologii, choć to właśnie strategie redukcji znajdują się obecnie na najbardziej zaawansowanym etapie rozwoju. Jedna z nich, już z powodzeniem wdrożona, polega na wykorzystaniu transgenicznych samców Aedes aegypti niosących letalną mutację dominującą (rycina 9.15). Mutacja ta sprawia, że samce są zależne od tetracykliny. Samce komara hoduje się w laboratorium do momentu osiągnięcia przez nie postaci dorosłej w obecności antybiotyku. Po uwolnieniu transgeniczne samce łączą się w pary z samicami typu dzikiego, a następnie umierają z powodu braku tetracykliny. Dominująca mutacja letalna wyrażona u potomstwa uśmierca larwy, zanim zdążą się przepoczwarzyć.