Volum 70, 2020
Destacats de ciència
2 Editorial. Maria Montserrat Sala El racó de la SCB. Jordi Barquinero
Flaixos de ciència 67 Líquens de Barcelona, un projecte de ciència ciutadana amb la col·laboració de Ciència en Societat, IRBio i Natusfera Laura Force Seguí 69 Què s’amaga entre la posidònia? Guillem Castro i Tina Mendoza 70 Mycoplasma pneumoniae: quan menut no implica simple Verónica Lloréns Rico 73 Dinosaures dels Pirineus, una proposta de divulgació paleontològica al territori Àngel Galobart i Pere Figuerola 76 Paleontologia, la ciència del passat mirant al futur: cap a una paleobiologia evolutiva Salvador Moyà-Solà
El que el mar amaga 3 Pròleg Maria Montserrat Sala, Francesc Peters, Cèlia Marrasé i Marta Estrada 4 Virus marins: trossets de vida indispensables per al funcionament del planeta Dolors Vaqué, Ana Sotomayor-Garcia i Yaiza M. Castillo 8 Un mar microbià Maria Montserrat Sala 12 Petits depredadors marins Ramon Massana 18 Colors d’aigua, colors d’algues Elisa Berdalet 27 Les comunitats marines dominades per animals sèssils Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso 33 Com es defensen els organismes antàrtics marins? Armes químiques sota el gel Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler 39 Els gegants marins que ens visiten Beatriu Tort, Eduard Degollada, Natàlia Amigó i Francesc Peters 45 Dels mites a la realitat: com comunicar l’aqüicultura Lourdes Reig i Rosa Flos 51 Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón 60 Beneficis dels ecosistemes marins per a la salut i el benestar de les persones Josep Lloret i Arnau Carreño
treballs de la Societat Catalana de Biologia
Entrevista Premi Ramon Margalef d’Ecologia 79 Stephen R. Carpenter, Premi Ramon Margalef d’Ecologia 2018 Bru Papell Premi Gemma Rosell i Romero 2019 81 De tecnologia hàptica a percepció tàctil en cirurgia robòtica Arturo Yscadar Cos, Antonio Alcaraz Asensio i Manel Puig-Vidal Centre 84 Marimurtra: de Goethe a Linné passant per Epicur Josep M. Camarasa Premi Nobel de Fisiologia o Medicina 2018 87 El Premi Nobel 2018 guardona la immunoteràpia del càncer Jordi Barquinero
treballs de la Societat Catalana de Biologia
Destacats de recerca
El fet 90 Microfibres tèxtils de plàstic: de la rentadora al plat Anna Sanchez Vidal Ciència en societat 91 Cantata del genoma David Jou Lectura 92 La ciència i les conseqüències Oriol Izquierdo
ogia Si t’interessa la biolço s
i vols…
...conèixer els darrers aven ió de seminaris ...participar en l’organitzac ...rebre la revista . llibres, cursos i jornades.. es? ...gaudir de descomptes en ...per què no t’hi associ
1912 2012 Coberta TSCB-70.indd 1
PLACA NARCÍS
MONTURIOL
2003
CREU DE SANT JORDI
2012
Volum 70
http://scb.iec.cat
Volum 70 2020 · revista anual
ISSN 0212-3037 (edició impresa) ISSN 2013-9802 (edició digital)
30/3/21 14:05
Treballs de la Societat Catalana de Biologia, revista anual de la SCB Societat Catalana de Biologia, filial de l’Institut d’Estudis Catalans Carrer del Carme, 47. 08001 Barcelona scb@iec.cat
cietat
de la So
a de Biologia t Catalan de la Societa treballs
ciutadana fera te de ciènciaIRBio i Natus at, un projec de ciènci Flaixos s de Barcelona, Ciència en Societ de 67 Líquen col·laboració 0 amb la Seguí m 70, 202 nia? Sala a simple Laura Forcega entre la posidòoza no implic Montserrat inero Mend s’ama menut 69 Què m Castro i Tina torial. Maria Jordi Barqu oniae: quan la SCB. Guille ació acó de lasma pneum de divulg 70 Mycopica Lloréns Rico s, una proposta rca Verón Pirineu de rece ures dels territori Dinosa al stacats ca 73 rola t al futur: tològi Figue sé paleon amaga art i Pere del passat miran , Cèlia Marra ue el mar sc Peters Àngel Galob a, la ciència France evolutiva tologi Pròleg errat Sala, 76 Paleon paleobiologia les Maria Monts a cap a una Moyà-Solà indispensab Estrad gia 2018 d’Ecologia ts de vida a Castillo i Marta Salvador s: trosse Margalefn Margalef d’Ecolo planet Yaiza M. Ramon i Virus marin nament del ayor-Garcia i Prem Premi Ramo per al funcio , Ana Sotom Entrevistan R. Carpenter, Vaqué Dolors 79 Stephe l ià robòtica microb Bru Papel ro 2019 cirurgia 8 Un marMontserrat Sala s l i Rome tàctil en io a Rosel a a percepció Maria adors marin z Asens Gemm depred Premi ogia hàptic Antonio Alcara 12 Petits n Massana es Cos, 81 De tecnol Ramo colors d’algu Yscadar ls sèssils Arturo d’aigua, idal per anima ell-Simón l Puig-V 18 Colors let dominades i Mane a Vendr Elisa Berdaitats marines nt per Epicur r, Begoñ passa Salaza Linné comun ea s? 27 Les -Maria Gili, Janire Centre urtra: de Goeth ics marin Josep oso ismes antàrt r 84 Marim M. Camarasa o Ambr ina 2018 pia del cànce i Stefan en els organgel Josep Medic o defens noterà el es ogia n, Paula 33 Com químiques sota de Fisiol guardona la immu Martín-Martí o-Preckler Nobel Armes Premi Nobel 2018 Àvila, Rafael Carlos Angul Conxita -Fernández i 87 El Premi inero ens visitenNatàlia Amigó Jordi Barqu de Castro ts marins que ora al plat lada, d Degol : de la rentad ultura 39 Els gegan Tort, Eduar de plàstic icar l’aqüic El fet Beatriu Peters ibres tèxtils comun sc 90 Microf Sanchez Vidal i France a la realitat: com ts s flotan Anna mites Flos dels plàstic 45 Dels es Reig i Rosa at màtica societ Lourd rejón proble en la Ciència ta del genoma sco Ruiz-O benestar em veus: oceans 51 Ara nostres mars i i Luis Francia la salut i el 91 Canta Jou en els , Juan Ramis marins per David Rafael Sardá ecosistemes cis dels üències 60 Benefi persones o Lectura i les conseq Carreñ de les i Arnau 92 La ciència rdo Josep Lloret Oriol Izquie
i vols… logia ocies? is a la bionços cat t’hi ass teress rers ave de seminar què no p://scb.iec. ades... Si t’in er els dar anització ...per htt os i jorn
1912 2012
PLACA NARCÍS
OL
MONTURI
2003
CREU DE SANT JORDI
2012
Volum
70
curs ...conèix par en l’org llibres, ...partici la revista ptes en ...rebre de descom ...gaudir
ls
trebal
cia
ts de cièn Destaca a
70 l Vo·lum revista anua impresa) 2020
3037 (edició l) ISSN 0212- 9802 (edició digita ISSN 2013-
Catalana
logia
de Bio
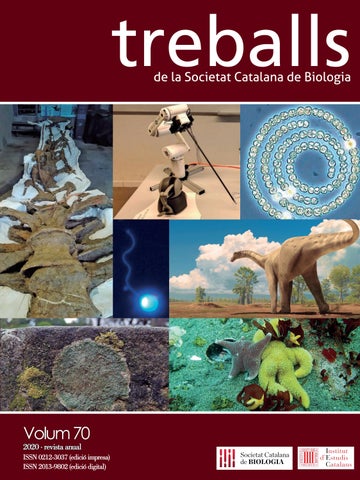
1) Coll de titanosaure (p. 74). 2) Braç robòtic amb control hàptic (p. 82). 3) Filament de Dolichospermum (=Anabaena), cianobacteri d’aigua dolça (p. 20). 4) Flagel·lat heteròtrof marí (p. 14). 5) Recreació d’un titanosaure (p. 73). 6) Liquen, Lecanora campestris (p. 68). 7) Comunitats bentòniques antàrtiques (p. 36).
La propietat intel·lectual dels articles és dels autors respectius. La SCB està exempta de tota responsabilitat derivada de l’eventual vulneració de drets de propietat intel·lectual per part dels autors. Els continguts publicats a la revista estan subjectes —llevat que s’indiqui el contrari en el text o en el material gràfic— a una llicència Reconeixement - No comercial Sense obres derivades 3.0 Espanya (by-nc-nd) de Creative Commons, el text complet de la qual es pot consultar a http://creativecommons.org/licenses/by-nc-nd/3.0/ es/deed.ca. Així doncs, s’autoritza el públic en general a reproduir, distribuir i comunicar l’obra sempre que se’n reconegui l’autoria i l’entitat que la publica i no se’n faci un ús comercial ni cap obra derivada. treballs de la societat catalana de biologia no es fa responsable de les idees i opinions exposades pels autors dels articles publicats.
© Societat Catalana de Biologia, filial de l’Institut d’Estudis Catalans, per a aquesta edició Dipòsit Legal B 12164-1963 ISSN 0212-3037 (ed. impresa) 2013-9802 (ed. digital) Web de la versió digital: http://revistes.iec.cat/index.php.TSCB
COMITÈ DE PUBLICACIONS Maria Montserrat Sala, presidenta, ICM-CSIC Ricard Roca, vocal, SCB Rafel Abós-Herràndiz, vocal, ICS Josep M. Espelta, vocal, UAB
Imprès per Ediciones Gráficas Rey, SL
EQUIP EDITORIAL Oriol Izquierdo, cap editorial Maria Montserrat Sala, redacció editorial Unitat de Correcció Editorial, IEC, correcció
La Societat Catalana de Biologia (SCB) és una de les filials més antigues de l’Institut d’Estudis Catalans. Està regida per un Consell Directiu i organitzada en seccions especialitzades, que són les que organitzen les activitats principals que duu a terme la Societat. CONSELL DIRECTIU DE LA SCB
SECCIONS
Presidenta: Montserrat Corominas Vicepresident primer: Jordi Barquinero Vicepresident segon: Marc Martí-Renom Secretari general: Albert Jordan Vicesecretari: Oriol Cabré Tresorera: Marina Rigau Vocal d’Acció Territorial: Eduard Escrich Vocal de Comunicació: Raúl Delgado Vocal d’Ensenyament: Jordi Morral Vocal de Promoció: Oriol Iborra Vocals de Publicacions i Lexicografia: Maria Montserrat Sala Vocal de Seccions: Josep Saura Delegat de l’IEC: Jaume Bertranpetit
Aqüicultura: Nerea Roher Biofísica: Àlex Perálvarez Bioinformàtica i Genòmica: Roderic Guigó Biologia del Desenvolupament: Francesc Cebrià Biologia Evolutiva: Josefa González Biologia Molecular: Joan Roig Biologia del Càncer: Oriol Casanovas Biologia i Societat: Laura Castarlenas Biologia de la Reproducció: Rafael Oliva Cromatina i Epigenètica: Albert Jordan Ecologia: Josep Maria Espelta Ensenyament: Jordi Morral Biologia de Plantes: Anna Caño Microbiologia: Eduard Torrents Neurobiologia Experimental: Carles Saura Senyalització Cel·lular i Metabolisme: Laura Herrero Virologia: Núria Busquets SCB a Alacant: Sergi Soriano SCB a Balears: Anna Traveset i Núria Marbà SCB a Catalunya Sud: Jaume Folch i Miguel Mulero SCB a Castelló: Vicent Arbona i Ferran Martínez-Garcia SCB a Girona: Elisabeth Pinart i Enrique Verdú SCB a Lleida: Judit Ribas SCB a València: Lluís Pascual SCB a Vic: Julita Oliveras
Coberta TSCB-70.indd 2
NORMES DE PRESENTACIÓ D’ARTICLES PER ALS AUTORS DE TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA RULES FOR SUBMISSION OF ARTICLES BY AUTHORS TO TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA Abast La revista treballs de la societat catalana de biologia (Treb. Soc. Cat. Biol.), editada per la Societat Catalana de Biologia (SCB), filial de l’Institut d’Estudis Catalans (IEC), publica articles de l’àmbit de les ciències de la vida en llengua catalana (i ocasionalment en altres llengües). Aquesta revista consta de dues seccions: — «Destacats de recerca». Conjunt d’articles de recerca o de revisió sobre un tema monogràfic que tracta d’alguna qüestió científica concreta. Un coordinador, expert en el tema, encarrega els articles a un equip d’autors i en supervisa la redacció. Si voleu fer de coordinador d’un tema del vostre interès per als «Destacats de recerca», poseu-vos en contacte amb la secretaria de la SCB (scb@iec.cat). — «Destacats de ciència». Conjunt d’articles de divulgació, d’actualitat i d’opinió científica sobre temes diversos. Si voleu proposar un article per als «Destacats de ciència», poseu-vos en contacte amb la secretaria de la SCB (scb@iec.cat). Els autors que també siguin socis de la SCB tenen preferència en el procés d’acceptació dels articles.
Scope The journal treballs de la societat catalana de biologia (Treb. Soc. Cat. Biol.), published by the Societat Catalana de Biologia (SCB), a subsidiary of the Institut d’Estudis Catalans (IEC), releases articles in the field of life sciences in the Catalan language (and occasionally in other languages). The journal comprises two sections: — “Destacats de recerca”: articles in the field of research or a monographic review of a topic in a specific scientific field. A coordinator expert in the field commissions the articles to a team of authors and supervises the drafting process. If you would like to take part as a coordinator for a topic of your interest for the “Destacats de recerca” section you can contact the SCB secretary at scb@iec.cat. — “Destacats de ciència”: articles about popular science, current affairs and scientific opinion on a range of topics. If you would like to propose an article for the “Destacats de ciència” section you can contact the SCB secretary at scb@iec.cat. Authors who are also SCB members have preference in the article admission process.
Procés editorial Els articles, un cop rebuts, se sotmeten a un procés de revisió externa de forma i de contingut. En acabat, poden ser: a) acceptats sense canvis, b) rebutjats o c) acceptats amb esmenes proposades als autors. En aquest darrer cas, és un requisit indispensable per a publicar-los que l’autor accepti introduir les esmenes proposades. Els autors rebran unes galerades perquè les revisin. En aquest procés només poden introduir-hi esmenes de caràcter lingüístic i tècnic, però no de contingut. En casos especials, la SCB podrà demanar als autors revisions addicionals. Els autors rebran sense càrrec un exemplar de la revista un cop publicada.
Publishing process Upon receipt, articles undergo a peer review of form and content. Once this process is complete, the articles may: a) be accepted without changes; b) be rejected; or, c) be accepted, albeit with the author being advised to make amendments. In the latter case, authors must agree to make the changes proposed in order for the articles to be published. Authors will be given galley proofs in order to review them. At this stage of the process they will only be able to make technical or linguistic amendments and not changes related to content. In specific circumstances, the SCB may ask authors to carry out additional reviews. Authors will receive a copy of the journal free of charge once it has been published.
Criteris generals de presentació d’articles Els autors en el moment de lliurar els articles per a sol·licitar-ne la publicació accepten els termes següents: — Els autors cedeixen a la SCB els drets de reproducció, comunicació pública i distribució dels articles presentats per a ser publicats a treballs de la societat catalana de biologia. — Els autors responen davant la SCB de l’autoria i l’originalitat dels articles presentats. — És responsabilitat dels autors l’obtenció dels permisos per a la reproducció de tot el material gràfic inclòs en els articles. Els articles han de tenir l’extensió demanada (tenint en compte que cal incloure els espais en blanc en el comptatge de caràcters) i el nombre de taules i de figures ha de ser el mínim imprescindible per a facilitar la comprensió del text. En cas que la llargària no s’adeqüi als criteris especificats o que el nombre de taules o figures es consideri excessiu, la SCB podrà proposar canvis pel que fa a aquests aspectes abans d’acceptar l’article. Els articles s’han d’enviar en un arxiu en format Microsoft Word o OpenDocument. Aquest arxiu ha de contenir només text (article, bibliografia, taules, peus, etc.). Les figures s’han d’enviar en arxius a part i, si contenen text (a part dels peus) ha d’estar en un format que permeti editar-lo. Si la taula o la figura té copyright, cal indicar-ho. La bibliografia s’ha de compondre tal com s’exemplifica tot seguit, per bé que, posteriorment, els editors adequaran tipogràficament aquestes referències a l’estil de la publicació: Codina, C. [et al.] (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. Mellado, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: Vicente, M.; Renart, J. (ed.). Ingeniería genética. Madrid: CSIC, 21-30. Wolffe, A. (1995). Chromatin structure and function. Londres: Academic Press. Les referències bibliogràfiques completes han d’aparèixer ordenades alfabèticament al final dels articles i, si contenen més de dos autors, cal escriure només el primer, seguit de la indicació et al. entre claudàtors. Les remissions a la bibliografia dins el text han de seguir el sistema de cognom i any, no pas un sistema numèric, i, si contenen més de dos autors, cal escriure només el primer, seguit de la indicació et al., en aquest cas sense claudàtors.
General criteria for submitting articles On submitting articles for publication, authors accept the following terms: — Authors assign to the SCB the rights of reproduction, communication to the public and distribution of the articles submitted for publication to treballs de la societat catalana de biologia. — Authors answer to the SCB for the authorship and originality of submitted articles. — Authors are responsible for obtaining permission for the reproduction of all graphic material included in articles. Articles must be of the required length (character counts must include spaces) and the number of tables and figures should be kept to a minimum in order to simplify understanding of the text. If the length is unsuitable for the specified criteria or if there are too many tables or figures, the SCB may propose changes concerning these areas before accepting the article. Articles must be submitted in Microsoft Office or OpenDocument format. The file should contain text only (the main article, references, tables, figure captions, etc.). Fi gures must be sent in separate files and if they incorporate text (aside from captions) the file format must allow for them to be edited. If a table or figure is copyrighted, this circumstance must be specified. References must be set out as shown below, although the editors may subsequently adapt them according to the definitive publishing style: Codina, C. [et al.] (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. Mellado, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». In: Vicente, M.; Renart, J. (ed.). Ingeniería genética. Madrid: CSIC, 21-30. Wolffe, A. (1995). Chromatin structure and function. London: Academic Press. Full bibliographic references must be set out in alphabetical order at the end of articles and, if they contain more than two authors, only the first author should be specified followed by the indication et al. in square brackets. References to the bibliography within the text must follow the author-year system rather than being in numerical order of appearance and, if they contain more than two authors, only the first author should be specified followed by the indication et al. without square brackets.
Criteris específics per als articles de «Destacats de recerca» Els articles de la secció «Destacats de recerca» han de tenir una extensió entre 20.000 i 30.000 caràcters i han d’incloure els apartats següents: títol; noms i cognoms dels autors; filiació de tots els autors; autor per a la correspondència (cal indicar-ne les adreces postal i electrònica, i el telèfon); resum en català (d’una extensió màxima de 1.000 caràcters); paraules clau en català (com a màxim cinc); títol, resum i paraules clau en anglès (que han de ser fidels, en extensió i contingut, als corresponents en català); text de l’article (amb un màxim de dos nivells d’apartats); bibliografia; taules, i peus de figura.
Specific criteria for articles in the “Destacats de recerca” section Articles in the “Destacats de recerca” section should be between 20,000 and 30,000 characters long and include the following information: title; authors’ names and surname; personal particulars of all authors; contact author (email, address and telephone number required); abstract in Catalan (1,000 characters maximum); keywords in Catalan (maximum of 5); title, abstract and keywords in English (which must be true to the Catalan versions in terms of length and content); main text of the article (with two sections of levels at the most); references; tables and figure captions.
Criteris específics per als articles de «Destacats de ciència» Els articles de la secció «Destacats de ciència» han d’incloure els apartats següents: títol (no acadèmic), subtítol (opcional, i aquest pot ser més acadèmic), noms i cognoms dels autors i filiació de tots els autors. A més, si n’hi ha, bibliografia, taules i peus de figura.
Specific criteria for articles in the “Destacats de ciència” section Articles in the “Destacats de ciència” section must include the following information: title (non-academic), subtitle (optional and may be more academic), authors’ names and surname and personal particulars of all authors. In addition, if applicable, references, tables and figure captions.
Protecció de dades personals L’Institut d’Estudis Catalans (IEC) compleix el que estableix el Reglament general de protecció de dades de la Unió Europea (Reglament 2016/679, del 27 d’abril de 2016). De conformitat amb aquesta norma, s’informa que, amb l’acceptació de les normes de publicació, els autors autoritzen que les seves dades personals (nom i cognoms, dades de contacte i dades de filiació) puguin ser publicades en el volum corresponent de treballs de la societat catalana de biologia. Aquestes dades seran incorporades a un tractament que és responsabilitat de l’IEC amb la finalitat de gestionar aquesta publicació. Únicament s’utilitzaran les dades dels autors per a gestionar la publicació de treballs de la societat catalana de biologia i no seran cedides a tercers, ni es produiran transferències a tercers països o organitzacions internacionals. Un cop publicada la revista, aquestes dades es conservaran com a part del registre històric d’autors. Els autors poden exercir els drets d’accés, rectificació, supressió, oposició, limitació en el tractament i portabilitat, adreçant-se per escrit a l’Institut d’Estudis Catalans (carrer del Carme, 47, 08001 Barcelona), o bé enviant un correu electrònic a l’adreça dades.personals@iec.cat, en què s’especifiqui de quina publicació es tracta.
Protection of personal data Institut d’Estudis Catalans (IEC) complies with the provisions of the General Data Protection Regulation of the European Union (Regulation 2016/679 of 27 April 2016). In accordance with this regulation, we state that, with the acceptance of the publication rules, authors authorise that their personal data (forenames and surnames, contact data and affiliation data) may be published in the respective volume of the journal treballs de la societat catalana de biologia. These data will be incorporated to a processing controlled by IEC for the purpose of managing this publication. The authors’ data will be used solely for managing the publication of the journal and they will not be transferred to third parties nor will transfers be made to third countries or to international organisations. Once the journal has been published, these data will be stored as part of the historical record of authors. Authors may exercise the rights of access, rectification, erasure, objection, restriction of processing and portability by addressing themselves in writing to Institut d’Estudis Catalans (Carrer del Carme, 47, 08001 Barcelona, Spain) or by sending an e-mail to the address dades.personals @iec.cat, in which the publication in question should be specified.
30/3/21 14:05
Índex
70 2 El racó de la SCB. Jordi Barquinero Editorial. Maria Montserrat Sala
Destacats de recerca El que el mar amaga Pròleg
Montserrat Sala, Francesc Peters, 3 Maria Cèlia Marrasé i Marta Estrada
s’amaga entre la posidònia? 69 Què Guillem Castro i Tina Mendoza
Mycoplasma pneumoniae: quan menut no implica simple
4 Dolors Vaqué, Ana Sotomayor-Garcia i Yaiza M. Castillo
70
8 Maria Montserrat Sala
73 de divulgació paleontològica al territori
Virus marins: trossets de vida indispensables per al funcionament del planeta
Un mar microbià
depredadors marins 12 Petits Ramon Massana d’aigua, colors d’algues 18 Colors Elisa Berdalet Les comunitats marines dominades per animals sèssils
27 Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso
Com es defensen els organismes antàrtics marins? Armes químiques sota el gel
33 Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler
Verónica Lloréns Rico
Dinosaures dels Pirineus, una proposta Àngel Galobart i Pere Figuerola
76
Paleontologia, la ciència del passat mirant al futur: cap a una paleobiologia evolutiva Salvador Moyà-Solà
Entrevista Premi Ramon Margalef d’Ecologia Stephen R. Carpenter, Premi Ramon Margalef d’Ecologia 2018
79
Bru Papell
Premi Gemma Rosell i Romero 2019 De tecnologia hàptica a percepció tàctil en cirurgia robòtica
81
Arturo Yscadar Cos, Antonio Alcaraz Asensio i Manel Puig-Vidal
Centre
gegants marins que ens visiten 39 Els Beatriu Tort, Eduard Degollada, Natàlia Amigó i Francesc Peters
de Goethe a Linné passant per Epicur 84 Marimurtra: Josep M. Camarasa
mites a la realitat: com comunicar l’aqüicultura 45 Dels Lourdes Reig i Rosa Flos
Premi Nobel de Fisiologia o Medicina 2018 El Premi Nobel 2018 guardona la immunoteràpia del càncer
87
Jordi Barquinero
51
Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón
El fet
60
Beneficis dels ecosistemes marins per a la salut i el benestar de les persones
tèxtils de plàstic: de la rentadora al plat 90 Microfibres Anna Sanchez Vidal
Josep Lloret i Arnau Carreño
Destacats de ciència Flaixos de ciència Líquens de Barcelona, un projecte de ciència ciutadana amb la col·laboració de Ciència en Societat, IRBio i Natusfera
67
Laura Force Seguí
Revista TSCB 70.indd 1
Ciència en societat del genoma 91 Cantata David Jou Lectura ciència i les conseqüències 92 La Oriol Izquierdo
29/3/21 14:57
Editorial Benvolguts lectors, Començo la meva etapa com a vocal de Publicacions i Lexicografia de la Societat Catalana de Biologia amb la publicació del número 70 de treballs. En aquest volum us convido a endinsar-vos en les profunditats marines amb una primera part monogràfica de deu articles que s’engloben sota el títol «El que el mar amaga», editats per Maria Montserrat Sala, Francesc Peters, Cèlia Marrasé i Marta Estrada. Si seguiu viatjant pel volum hi trobareu la segona part, que comprèn textos d’alta divulgació científica dins els «Destacats de ciència». Els «Flaixos de ciència» contenen temes ben diversos: comencen amb la descripció d’un projecte de ciència ciutadana sobre els líquens de Barcelona, de Laura Force; segueixen amb la descoberta dels organismes que s’amaguen a les praderies de posidònia, de Guillem Castro, Premi SCB al Treball de Recerca de Batxillerat; després Verónica Lloréns Rico ens descriu el petit però complex bacteri Mycoplasma pneumoniae i, per acabar, Àngel Galobart i Pere Figuerola presenten una proposta de divulgació paleontològica dels dinosaures dels Pirineus. El volum inclou un article de revisió de l’evolució de la paleontologia en el temps, de Salvador Moyà-Solà, Premi SCB a la Trajectòria Professional. Bru Papell entrevista el limnòleg Stephen Carpenter, Premi Ramon Margalef d’Ecologia 2018, i conversa amb ell sobre la seva recerca i els canvis que estan patint els ecosistemes. El treball guanyador del Premi Gemma Rosell i Romero, dels autors Arturo Yscadar Cos, Antonio Alcaraz Asensio i Manel Puig-Vidal, ens mostra el disseny d’una prova de concepte d’integració de tecnologia hàptica amb una eina quirúrgica per a dotar un robot amb percepció tàctil. Com a «Centre», Josep M. Camarasa ens presenta i descriu la història del Marimurtra, el jardí botànic ple d’història de Blanes. Jordi Barquinero fa una ressenya del Premi Nobel de Fisiologia o Medicina 2018 atorgat a James P. Allison i Tasuku Honjo, descobridors dels mecanismes de control de la resposta immunitària que han tingut com a resultat una nova manera de tractar el càncer. A «El fet», Anna Sánchez Vidal ens descriu com les microfibres tèxtils poden arribar al nostre plat i com la nostra petjada de plàstic al planeta és més gran del que ens pensem. Dins de «Ciència en societat», David Jou ens ofereix una cantata del genoma. Finalment, a «Lectura», Oriol Izquierdo fa una ressenya del llibre L’esperit del temps, de Martí Domínguez. Com ja sabeu, a part de l’edició en paper, teniu a la vostra disposició tots els articles també al nostre web https://scb.iec.cat/treballs-de-la-scb/ per a descarregar-los. Com a vocal de Publicacions i Lexicografia, agafo amb il·lusió el testimoni que em deixa Dolors Vaqué, que va fer una excel·lent tasca de transformació i modernització de la revista treballs, i entomo el repte amb força i amb el recolzament de la resta del Consell Directiu de la Societat Catalana de Biologia. Desitjo que gaudiu de la lectura del volum. Maria Montserrat Sala, vocal de Publicacions i Lexicografia
El racó de la SCB La covid-19 i nosaltres Els humans tenim una tendència a pensar que el món que ens envolta és immutable, però això és un miratge degut al fet que l’escala temporal en què ens movem és molt petita. I ja no parlo de l’escala temporal dels fenòmens cosmològics o geològics que ni tan sols podem experimentar amb els sentits, també és així quan parlem de fenòmens que es van repetint periòdicament cada poques dècades, com les grans pandèmies. Si repassem la història recent, per exemple dels darrers dos segles, la humanitat ha patit poc més d’una desena de pandèmies, aproximadament una cada vint anys. La darrera, la covid-19, provocada per un virus procedent probablement dels ratpenats, que utilitza una simple cadena d’RNA de trenta mil lletres i només quinze gens, ha suposat un malson per a una altra espècie, la nostra, extraordinàriament més complexa i que ha creat una civilització suposadament avançada. Una altra tendència que també tenim els humans, i en especial els que hem viscut en èpoques més recents, és a pensar que la ciència i la medicina són totpoderoses i ens podran guarir de tots els mals que ens amenacin, especialment els produïts per bacteris i virus causants de plagues, que en molts casos són percebuts com fantasmes d’altres temps. Però aquests malabarismes de la nostra ment no deixen de ser fal·làcies que tard o d’hora acaben colpejant-nos contra la tossuda realitat. En la pandèmia de sida del anys vuitanta del segle passat, la identificació del virus causant —el virus de la immunodeficiència humana (VIH)— va tardar anys, i més de tres dècades després encara no es disposa d’una vacuna eficaç. La identificació del SARS-CoV-2 com l’agent etiològic responsable de la covid-19 en unes poques setmanes després d’aparèixer els primers casos coneguts no té precedents en la nostra història. Ni tampoc que en pocs mesos s’hagi seqüenciat el genoma de milers de variants del virus, caracteritzat el seu mecanisme infectiu i aprovat un medicament (Remdesivir) que ha demostrat una certa eficàcia en pacients greus. L’aplicació de mesures tradicionals de salut pública (higiene, distanciament, confinament) ha ajudat molt a controlar la propagació del virus. Val a dir que la humanitat ha jugat amb un cert avantatge; el 2002 i el 2012 dos coronavirus cosins germans d’aquest (els del SARS i el MERS) provocaren brots epidèmics amb una letalitat més gran, però amb una menor contagiositat, que va permetre controlar-los abans que s’estengueren massa. Eren els primers avisos, i la comunitat científica es va posar les piles, però en ser controlats els brots es va aturar la recerca, tot i que el que es va aprendre d’aquelles malalties ha estat crucial per conèixer millor la covid-19. Actualment el virus continua segant milers de vides cada dia, no sabem per què una gran majoria de gent passa la infecció de forma lleu o asimptomàtica mentre que altres es moren, desconeixem molts aspectes de la immunitat que es genera i, en el moment de revisar aquest text (febrer del 2021), tot just s’han començat a administrar les primeres vacunes aprovades. Tots volem creure que guanyarem aquesta cursa de fons, però encara no en sabem el preu. És probable que moltes pandèmies es deguin a la devastació que la nostra espècie provoca a la biosfera. És imperatiu que trobem un model de vida respectuós amb l’entorn, del qual depenem críticament. A l’inici de la pandèmia, el personal sanitari, va ser crucial per aturar el primer cop. Ara la comunitat científica s’ha activat per trobar una solució definitiva. També els polítics es van comprometre a invertir més en sanitat pública i en ciència, molt debilitades després d’una dècada de retallades sistèmiques. Esperem que la «nova normalitat» sigui una versió més respectuosa i sostenible que l’anterior; això seria una gran victòria per a la humanitat. Jordi Barquinero, vicepresident de la SCB
Revista TSCB 70.indd 2
30/3/21 14:14
El que el mar amaga
Pròleg Maria Montserrat Sala, Francesc Peters, Cèlia Marrasé i Marta Estrada (editors) El mar ha estat una font de recursos, principalment aliments, per a la humanitat ja des de l’edat de pedra. Cap a l’edat mitjana va augmentar l’ús comercial del mar, al principi limitat a les àrees costaneres i després ja amb desplaçaments creuant oceans. I, des de finals del segle xix i sobretot a partir de mitjans del segle xx, s’ha incrementat molt l’ús del mar també per a l’oci i la recerca. Avui, al segle xxi, el mar ens segueix aportant tota una sèrie de beneficis als humans, en forma de recursos, però també culturals i de regulació climàtica. Els recursos marins que aprofitem són principalment en forma d’aliments, entre altres peix, marisc i algues, però l’oceà és també un tresor on podem trobar molècules que ens ajuden a curar malalties, són útils en cosmètica o milloren la nostra qualitat de vida. A més a més, el mar és font d’energia, com l’eòlica o la mareomotriu, i de recursos minerals, ja que se n’extreuen metalls, gas i petroli. Tot i que no sembla tan tangible, el mar ha tingut un paper important en el manteniment de la identitat de cultures costaneres, a través de les seves festes o la seva gastronomia i de l’imaginari col·lectiu general de la nostra societat. Aquesta societat que, des de mitjans del segle xx, ha trobat en el mar i les zones costaneres espais per realitzar activitats de lleure (banys d’aigua i sol, pesca i navegació recreatives, busseig i moltes més) que han derivat en activitats turístiques de caràcter massiu. A escala planetària, els oceans tenen un paper fonamental com a reguladors del clima, ja que, a més de distribuir calor a través dels corrents, fan d’embornal del principal gas d’efecte hivernacle, el CO2, que és captat de l’atmosfera i transferit a capes fondes de l’oceà. Però l’oceà és també destí final, intencionat o no, d’una gran part dels residus i contaminants produïts a terra per l’activitat humana. Malauradament, aquesta activitat afecta de manera negativa els ecosistemes marins. Segons el Programa de les Nacions Unides per al Medi Ambient (PNUMA) existeixen tota una sèrie d’impactes d’origen humà sobre els oceans, i el 41 % de la superfície marina es veu afectada per més d’un d’aquests impactes. Els principals im-
Revista TSCB 70.indd 3
pactes són l’acidificació dels oceans i l’emblanquiment dels coralls per l’augment de temperatura, l’increment d’algues tòxiques, meduses i espècies invasores, la pèrdua de la biodiversitat i d’hàbitats, la sobreexplotació d’espècies d’interès comercial, la contaminació química i per plàstics i la pujada del nivell del mar. Es preveu que aquests impactes augmentin amb l’increment de la població, que s’espera que arribi fins a nou mil milions el 2050. Això ha portat les Nacions Unides a proclamar el Decenni de les Ciències Oceàniques per a un Desenvolupament Sostenible, 2021-2030 (oceandecade.org). L’objectiu és potenciar la recerca marina per predir les conseqüències dels canvis i dissenyar estratègies de mitigació i adaptació. Per sort, cada vegada més, la societat es preocupa per l’estat de conservació del medi ambient i està conscienciada a actuar per millorar-lo, ja que finalment repercuteix sobre el propi benestar. Iniciatives com la recollida de plàstics a les platges o les protestes per revertir l’estat de moltes platges a estadis més naturals o per prevenir construccions desenfrenades al litoral català són cada cop més freqüents. Malgrat la impressionant adquisició de coneixement del medi marí que hem aconseguit en l’últim segle i l’evident ús i abús dels ecosistemes marins per part de la nostra societat, els mars i oceans continuen sent uns grans desconeguts. Es pot dir que a casa nostra molts veuen el mar simplement com una superfície de colors grisos, verds i blaus trencada per un onatge variable. En realitat és un medi amb un volum impressionant, que canvia contínuament tant de manera regular com puntual per episodis més o menys importants, i amb paisatges tan diversos com ho poden ser els terrestres, però ferhi observacions exhaustives és tècnicament, logísticament i econòmicament molt complicat. Dins d’aquest medi hi conviuen i interactuen organismes amb mides que van de dècimes de micròmetre a desenes de metres, cadascun amb particularitats pròpies. En aquest volum hem volgut aixecar la catifa d’aquesta superfície i oferir llambregades sobre la diversitat i els processos que passen al mar, tots ells de cabdal importància per al funcionament del planeta.
29/3/21 14:57
Virus marins: trossets de vida indispensables per al funcionament del planeta Dolors Vaqué, Ana Sotomayor-Garcia i Yaiza M. Castillo
DOI: 10.2436/20.1501.02.184 ISSN (ed. impresa): 0212-3037
Institut de Ciències del Mar (ICM-CSIC)
ISSN (ed. digital): 2013-9802
Correspondència: Dolors Vaqué. Institut de Ciències del Mar (ICM-CSIC). Passeig Marítim de la Barceloneta, 37-49. 08003 Barcelona. Adreça electrònica: dolors@icm.csic.es.
http://revistes.iec.cat/index.php/TSCB Rebut: 27/03/2019 Acceptat: 30/07/2019
Resum Els virus marins són les entitats biològiques més abundants que hi ha al mar. En un mil·lilitre (ml) en trobem deu milions i en tot l’oceà 1030. Infecten a tots els éssers vius des de balenes fins a procariotes (bacteris i arqueus). Sent aquests darrers molt abundants (un milió per ml), són els seus hostes preferits. Per tant, la major proporció de virus que hi ha al mar són bacteriòfags (del grec, ‘menjadors de bacteris’) de doble cadena de DNA encara que també se’n troben d’RNA. Tenen un paper cabdal a les xarxes tròfiques microbianes. Quan lisen els seus hostes (per exemple, bacteris i fitoplàncton), el contingut cel·lular ric en matèria orgànica dissolta passa a la columna d’aigua. Part d’aquesta matèria orgànica pot ser aprofitada pels bacteris per créixer i remineralitzada a nutrients inorgànics (N, P, S), que podran ser utilitzats pel fitoplàncton. Per tant, els virus desenvolupen un paper important en el control de l’abundància i diversitat de les comunitats microbianes i en els cicles biogeoquímics a l’oceà. Però no tots els virus són lítics; n’hi ha que s’integren en el genoma de l’hoste i esdevenen pròfags. El pròfag passa a ser un virus temperat i la cèl·lula portadora és el lisogen i pot transmetre’l a moltes generacions (cicle lisogènic), ja que la constitució genètica del bacteri canvia degut als nous gens que aporta el virus. A conseqüència de canvis ambientals i altres factors, el cicle lisogènic pot revertir al cicle lític, i llençar la nova progènie vírica fora amb el contingut cel·lular de l’hoste. Els diferents tipus de cicle d’infecció (lític i lisogènic) fan que els virus marins siguin el reservori més gran de diversitat genètica, ja que transfereixen gens dels hostes infectats a d’altres hostes. Finalment, els virus també tenen un paper important en la regulació del clima, ja que contribueixen a la producció de nuclis de condensació que són la llavor per a la formació de núvols, els quals es consideren elements que intervenen en el refredament del planeta.
Paraules clau: virus, microorganismes, lisi, lisogènia, nuclis de condensació.
Virus marins Els virus (del llatí virus, ‘toxina’ o ‘verí’) són la forma més senzilla de «vida». Estan formats per una càpsida de material proteic, la qual embolcalla i protegeix el genoma del virus, constituït per material genètic (vegeu la figura 1). Aquest pot estar format per cadenes dobles o senzilles de DNA (àcid desoxiribonucleic) o RNA (àcid ribonucleic). Els virus són agents infecciosos submicroscòpics que necessiten sempre un hoste per multiplicar-se (Breitbart i Rower, 2005). Tenen formes variades des d’helicoidals o icosaèdriques fins a estructures més complexes. Els virus els podem trobar arreu, al mar, al
Marine viruses: Pieces of life essential for the functioning of the planet Summary Marine viruses are the most abundant biological entities in the sea. We find 10 million in 1 ml and 1030 in the entire ocean. They infect all living beings, from whales to prokaryotes (bacteria and archaea). Since prokaryotes are very abundant (1 million per ml), they are the viruses’ favourite hosts. The largest proportion of viruses in the sea are double-stranded DNA bacteriophages, although RNA viruses are also found. In marine systems, viruses play a key role in the food web. When they lyse their hosts, they cause the cellular content rich in dissolved organic matter and recycled inorganic nutrients to enter the water column, where it is used by other bacteria and/or by photosynthetic microorganisms for their growth. Consequently, viruses control the abundance and diversity of the microbial communities and play a key role in the biogeochemical cycles in the ocean. But not all viruses are lytic: some integrate themselves into their host’s genome and become prophages or temperate viruses. The carrier cell of the prophage or temperate virus is a lysogen and the prophage can be transmitted to further generations, causing changes in its genome. Environmental changes or cellular stress could revert the lysogenic cycle to the lytic cycle, releasing new viral progeny with the cellular content of the host. The different types of infection (lytic and lysogenic) make marine viruses the largest reservoir of genetic diversity, either stealing genes and/or transferring them to their hosts. Lastly, viruses also could play an important role in the regulation of the climate, contributing to the production of condensation nuclei that act as seeds for the formation of clouds, considered cooling elements of our planet.
Keywords: viruses, microorganisms, lysis, lysogeny, condensation nuclei.
nostre cos, al sòl, etc. Al mar són les partícules biològiques més abundants, n’hi ha més de 107 en un mil·lilitre d’aigua, la qual cosa equival a 1030 virus a tot l’oceà (Fuhrman, 1999). Les seves mides van de 20 a 200 nm (Suttle, 2005; Suttle, 2007) i a voltes fins a 700 nm, pròpies
Càpsida
Material genètic
Figura 1. Fotografia d’un bacteriòfag al microscopi electrònic de transmissió (TEM). Fotografia: Castillo i Vaqué.
4
Revista TSCB 70.indd 4
dels virus gegants que infecten petits eucariotes com les microalgues (Wilhelm et al., 2017). Els virus marins poden infectar des de procariotes (bacteris i arqueus) fins a balenes, passant per peixos, aus marines, crustacis etc. Tanmateix, degut al fet que els bacteris són, després dels virus, els microorganismes més abundants (al voltant d’un milió per mil·lilitre), una proporció molt gran d’aquests virus són bacteriòfags (del grec, ‘menjadors de bacteris’). Es considera que la majoria d’aquests bacteriòfags són de doble cadena de DNA (dsDNA), els quals es divideixen en tres grans famílies: Myoviridae, que presenten una cua llarga i contràctil; Podoviridae, amb cua curta i no contràctil; i Syphoviridae, amb cua llarga i no contràctil (vegeu la figura 2). No obstant això, recentment també s’han descrit altres bacteriòfags i virus d’eucariotes sense cua (Brum et al., 2013) que contenen cadenes senzi-
Treballs de la Societat Catalana de Biologia, 70: 4-7
29/3/21 14:57
Virus marins: trossets de vida indispensables per al funcionament del planeta
Myoviridae
primavera i hi ha prou insolació i nutrients inorgànics (N, P, Si), els productors primaris (fitoplàncton) comencen a créixer (vegeu la figura 4). En fer-ho, excreten matèria orgànica dissolta que és aprofitada pels bacteris per dividir-se, i remineralitzar-la. El carboni bacterià passa a formar part de la dieta de pico/ nanoflagel·lats heteròtrofs, i al seu torn aquests són ingerits per altres protists més grans com ciliats (vegeu la figura 4). Més tard, Fenchel (1988) enllaça el bucle microbià amb la cadena clàssica alimentària (fitoplàncton-zooplàncton-peixos). És a dir, els ciliats són depredats per petits crustacis, com ara copèpodes (zooplàncton), els quals són depredats per les larves de peixos (vegeu la figura 4). Per tant, de la interacció d’aquests microorganismes planctònics dependrà la vida dels animals marins (peixos, aus, cetacis…). Però, quan semblava que estava tot clar, a principis dels anys noranta, autors com Bergh et al. (1989) i Proctor i Fuhrman (1990) descobreixen que el mar conté un nombre rellevant de virus, els quals tenen un paper important dins de les xarxes tròfiques microbianes. De fet, s’estableix una competència entre virus i protists per la presa (llaç víric, vegeu la figura 4). S’ha estimat que els virus són responsables d’entre el 10 % i el 50 % de la mortalitat bacteriana total (Fuhrman, 1999) en curtcircuitar el carboni bacterià, que sense els virus passaria als protists i d’aquí a nivells tròfics superiors. Prioritàriament, els virus marins infecten bacteris i cèl·lules de fitoplàncton, i a través de la lisi d’aquests microorganismes s’allibera el contingut cel·lular format per matèria orgànica dissolta i alguns oligoelements com Fe, Mn, i d’altres a la columna d’aigua. Part d’aquesta matèria orgànica podrà ser utilitzada
Syphoviridae
Podoviridae
100 nm Figura 2. Diferents famílies de virus. Fotografies: Lara, Castillo i Vaqué.
lles de DNA (Labonté i Suttle, 2013) i virus amb només cadenes d’RNA (Lang et al., 2009). Els virus, quan interaccionen amb l’hoste (per exemple un bacteri), reconeixen els receptors de la paret d’aquest, i inicien el cicle d’infecció, que pot ser entre els més habituals lític o lisogènic:
Cicle d’infecció lític Els virus introdueixen el seu genoma dins de la cèl·lula hoste, el qual donarà ordres a la maquinària genètica de l’hoste perquè fabriqui noves cadenes de DNA o RNA (en funció del tipus de genoma) i càpsides. En el pas següent hi ha un autoacoblament de les subunitats proteiques per formar les precàpsides i el posterior empaquetament del genoma viral en aquestes. Els virus ja formats excreten uns enzims anomenats lisines que lisen la paret cel·lular de l’hoste, i la progènie es dispersa fora amb el contingut cel·lular de l’hoste. El nombre de virus que surten de cada cèl·lula lisada s’anomena mida d’explosió (burst size). Per cada cèl·lula infectada poden sortir de vint a tres-cents virus (Steward et al., 1996; Weinbauer et al., 2002, vegeu la figura 3). Cicle d’infecció lisogènic Un cop els virus introdueixen el seu genoma dins de la cèl·lula hoste, aquest s’insereix al DNA de l’hoste, el virus s’anomena pròfag i esdevé un fag temperat. La dotació genètica del bacteri ja no és la mateixa, ja que ha incorporat el genoma viral, la qual cosa es coneix com conversió fàgica. Aquesta nova dotació gènica pot ser la responsable de canvis en la cèl·lula hoste perquè aquesta expressi determinats gens que produeixin funcions noves, o n’alterin algunes que ja tenia la cèl·lula (com factors de producció de virulència, canvis de metabolisme, desenvolupament cel·lular, etc., Hargreaves et al., 2014). No obstant això, el bacteri es divideix normalment, fins que en un determinat moment, els canvis ambientals o l’exposició a factors químics, radiació UV, etc., provoquen el canvi de cicle lisogènic a
cicle lític, la qual cosa acaba amb la lisi cel·lular (vegeu la figura 3). Per un banda el fet que l’hoste tingui un fag temperat és una bomba de rellotgeria, ja que en qualsevol moment la cèl·lula pot acabar lisada. Per altra banda, li confereix certs avantatges, com el de no ser infectada per un altre virus (Levin i Lenski, 1983) o el de no ser depredada (Brussow, 2007). Burrow descriu que el bacteriòfag fa que el bacteri produeixi toxines enfront dels depredadors protists. Finalment, tant en el cicle lític com en el lisogènic, els virus s’apropien de gens d’altri i els poden passar a diferents hostes. Això és el que s’anomena transferència horitzontal de gens. Per tant els virus són un gran reservori de la diversitat genètica al mar (Suttle, 2007).
Paper dels virus marins a les xarxes tròfiques microbianes Durant els anys vuitanta, concretament el 1983, Azam et al. publiquen un article en què es discuteix el paper que tenen els microorganismes a l’oceà, i apareix el concepte del bucle microbià, on el carboni bacterià passa a nivells tròfics superiors mitjançant la depredació dels picoeucariotes (petits protists). Quan arriba la
Adsorció
Inserció del pròfag
Reconeixement de l’hoste
Excreció de fags nous
CICLE LÍTIC Replicació del DNA del fag
CICLE LISOGÈNIC
Reorganització Síntesi de nous fags Excreció del Divisió cel·lular pròfag degut a canvis ambientals
Figura 3. Esquema dels cicles d’infecció lítica i lisogènica (Vaqué i Ruiz-González). Disseny: D. Vaqué Dibuixosvirus: C. Ruiz-González
Treballs de la Societat Catalana de Biologia, 70: 4-7
Revista TSCB 70.indd 5
Injecció DNA
5
30/3/21 14:14
Dolors Vaqué, Ana Sotomayor-Garcia i Yaiza M. Castillo
terianes? Doncs sí, s’ha evidenciat que els virus poden infectar diferents soques bacterianes. Hi ha virus amb diferents rang d’hostes (Holmfeldt et al., 2007), alguns molt específics i d’altres més generalistes (Weitz et al., 2013). Recentment, Knowles et al. (2016), a través de models empírics que relacionen les abundàncies de bacteris i virus, han observat que no hi ha una proporcionalitat clara entre l’increment de bacteris i de virus en diferents sistemes (marins, d’aigua dolça, humans…). De fet el que han obtingut és «més microbis, menys virus». A banda, han utilitzat aproximacions experimentals i dades genètiques que demostren que no es pot atribuir la lisi o la lisogènia a l’estat tròfic del sistema. Així doncs, en contraposició a la hipòtesi de «matar el guanyador», Knowles et al. (2016) apunten a la hipòtesi «anar a coll del guanyador» (piggy-back the winner). Per què un virus ha de lisar el seu hoste si aquest està dividint-se de forma òptima? Aquest canvi de paradigma ha suposat una gran sacsejada en l’ecologia de virus marins, i ha generat un gran debat i controvèrsia entre els investigadors que estan d’acord i els que no estan del tot d’acord amb ambdues postures (Thingstad i Bratbak, 2016; Weitz et al., 2017; Knowles i Rower, 2017; Knowles et al., 2017, Alrasheed et al., 2019).
Xarxa tròfica microbiana Llum Fitoplàncton
Llaç víric 10-40 % d–1
Protists
Cadena alimentària
MOD Virus
Bacteris Figura 4. Esquema de la xarxa tròfica microbiana. Dibuixos: Clara Ruiz-González.
per altres bacteris per créixer, i remineralitzada a nutrients inorgànics (N, P, S). Aquests, juntament amb els oligoelements, estaran a disposició dels productors primaris per créixer. S’ha determinat que en tot l’oceà els virus retornen ~140 Gt (1Gigatona =1015 grams) de carboni a l’any, provinent de la lisi bacteriana (Lara et al., 2017) i que cada segon aproximadament, es produeixen 1023 infeccions víriques (Suttle, 2007). Per tant, els virus contribuirien al control de l’abundància i diversitat dels microorganismes del plàncton i als canvis dels cicles biogeoquímics de l’oceà (Breitbart, 2012).
dueixi la infecció aniria lligada a la hipòtesi de «matar el guanyador» (kill the winner) postulada per Thingstad (2000). Tanmateix, però, s’ha demostrat que aquest fet no està tan clar (vegeu, per exemple, Boras et al., 2009; Lara et al., 2017). Aquests autors mostren que la lisogènia podia augmentar en zones productives, mentre que la lisi també es donava en zones oligotròfiques. Ens preguntàvem: com és que en zones oligotròfiques podia haver-hi taxes altes de lisi, si la probabilitat d’encontre entre un virus i l’hoste era baixa? Podria ser que un mateix virus infectés diferents soques bac-
Els virus marins i el canvi climàtic Que el planeta s’escalfa és un fet (IPCC, 2014). Que en els darrers cent anys el nivell de CO2 ha augmentat exponencialment degut a la crema de combustibles fòssils, també. Tanma-
Canvis de paradigma En alguns estudis s’observava que en sistemes oligotròfics (pobres en nutrients), els protists, degut a la seva capacitat natatòria, tenien una alta probabilitat de trobar-se amb la presa (Weinbauer i Rassoulzadegan, 2004), mentre que els virus, que a més se suposava que eren hoste-específics, al no tenir mobilitat autònoma tindrien més difícil interactuar amb l’hoste (presa) adequat. Per tant, el resultat més freqüent de la infecció donaria lloc a la lisogènia (Jiang i Paul, 1994; Weinbauer et al., 2003). En canvi en sistemes més rics en nutrients (eutròfics), amb més abundància de bacteris, la mortalitat de la presa deguda a virus podia ser més alta o similar a la causada per protists, ja que la probabilitat d’encontre entre l’hoste i el virus augmentaria. Per tant, el tipus d’infecció dominant donaria lloc a la lisi (Weinbauer i Peduzzi, 1995). Aquesta dependència dels virus envers l’abundància de l’hoste perquè es pro-
6
Revista TSCB 70.indd 6
!!"
CCN
Aerosols de sulfat i sulfonat
DMSg
DMSP
Liasa
DMSaq
Depredació Lisi
Figura 5. Esquema de la producció de DMS. Modificat a partir de l’esquema publicat a Simó (2001) i dibuixos de Clara Ruiz-González. Treballs de la Societat Catalana de Biologia, 70: 4-7
29/3/21 14:57
Virus marins: trossets de vida indispensables per al funcionament del planeta
teix, si no fos pel mar la concentració de CO2 que hi ha a l’atmosfera encara seria molt més alta. El mar actua tamponant els nivells de CO2 gràcies a la interacció atmosfera-oceà (Heinze et al., 2015), ja sigui mitjançant processos físics, químics o biològics. Així, el fitoplàncton actua captant CO2 per créixer, i bé mitjançant la ingestió per part del zooplàncton, que el digerirà i excretarà en forma de pilotes fecals, bé per sedimentació cel·lular, en ambdós casos aquest CO2 incorporat al fitoplàncton sedimentarà a l’oceà profund (bomba biològica, Passow i Carlson, 2010). Així mateix, els productors primaris retornaran oxigen al medi durant el procés de la fotosíntesi. Tanmateix, els microorganismes del plàncton poden contribuir a fer que la Terra no s’escalfi encara més afavorint la formació de núvols. Aquests fan que els rajos solars rebotin cap amunt (albedo) i l’ambient s’escalfi menys. Un núvol es forma gràcies a la presència de partícules de mides molt petites (de nanòmetres a micròmetres) que s’anomenen nuclis de condensació. Aquestes partícules poden tenir orígens diferents, entre ells el mar (Simó 2001, Dall’Osto et al.,
de núvols. Hill et al. (1998) demostren que perquè es formi DMS es necessita la intervenció de tots aquests microorganismes: fitoplàncton, virus i bacteris.
2017). Els nuclis de condensació poden ser primaris o secundaris. Els nuclis de condensació primaris són els que surten directament des de la superfície del mar a l’aire quan hi ha vent i es produeixen aerosols, que poden contenir cristalls de sal, virus, bacteris, microalgues, etc., en els quals s’hi enganxaria el vapor d’aigua per formar el núvol. En el cas de formació de nuclis de condensació secundaris, la producció és més complexa ja que intervenen processos físics, químics, biològics i biogeoquímics. Un exemple el trobem en la formació de productes derivats del DMSP (dimetilsulfoniopropionat) com el sulfur de dimetil (DMS). Algunes microalgues (per exemple els haptòfits) tenen DMSP intracel·lular. Quan són depredades per zooplàncton o lisades per virus, aquest DMSP s’allibera al medi i es transforma en DMSP dissolt. Per l’acció d’uns enzims (liases) produïts per bacteris i altres algues, el DMSP passa a DMS (Simó, 2001) el qual, per l’agitació del mar causada pel vent surt a l’atmosfera. Allà, s’oxida i finalment s’acaba transformant en cristalls de sofre que actuaran com a nuclis de condensació per a la formació
Els virus marins es caracteritzen per ser les partícules biològiques més abundants i per tenir un paper cabdal en el control de l’abundància i diversitat dels microorganismes que infecten. A la vegada són els responsables d’alliberar matèria orgànica dissolta com a conseqüència de lisar els bacteris que infecten. Aquesta matèria orgànica dissolta podrà ser utilitzada com a font d’energia per altres microorganismes que, així, retroalimentaran el cicle. Els virus es consideren, a més, els principals reservoris de diversitat genètica al mar, ja que roben gens d’uns hostes i els passen a d’altres, i faciliten així la transmissió horitzontal de gens. Finalment, els virus tenen un paper rellevant en la producció de nuclis de condensació que intervenen en la formació de núvols, els quals poden contribuir a revertir l’actual escalfament del planeta.
plankton: A potential climate process. Aquat. Microb. Ecol., 14: 1-6. Holmfeldt, K. [et al.] (2007). «Large variabilities in host strain susceptibility and phage host range govern interactions between lytic marine phages and their Flavobacterium hosts». Appl. Environ. Microbiol., 73: 6730-6739. DOI: 10.1128/AEM.01399-07. Intergovernmental Panel on Climate Change [IPCC] (2014). «Drivers, trends and mitigation». A: Working Group III contribution to the fifth assessment report of the Intergovernmental Panel of Climate Change. <https://www.ipcc.ch/site/assets/uploads/ 2018/02/ipcc_wg3_ar5_chapter5.pdf>. Jiang, S. C.; Paul, J. H. (1994). «Seasonal and diel abundance of viruses and occurrence of lysogeny/bacteriocinogeny in the marine environment». Mar. Ecol. Prog. Ser., 104: 163-172. Knowles, B. [et al.] (2016). «Lytic to temperate switching of viral communities». Nature, 531: 466-470. — (2017). «Variability and host density independence in inductions-based estimates of environmental lysogeny». Nat. Microbiol., 2: 1-9. DOI: 10.1038/nmicrobiol. 2017.64. Knowles, B.; Rohwer, F. replying to Weitz, J. S. [et al.] (2017). Nature, 549. <http://dx.doi.org/10.1038/ nature23295>. Labonté, J. M.; Suttle C. A. (2013). «Previously unknown and highly divergent ssDNA viruses populate the oceans». ISME J., 7: 2169-2177. Lang, A. S. [et al.] (2009). «RNA viruses in the sea». FEMS Microbiol. Rev., 33: 295-323. DOI: 10.1111/j.15746976.2008.00132.x. Lara, E. [et al.] (2017). «Unveiling the role and life strategies of viruses from the surface to the dark ocean». Sci. Adv., 3: e1602565. DOI: 10.1126/sciadv.1602565. Levin, B. R.; Lenski, R. E. (1983). «Coevolution in bacteria and their viruses and plasmids». A: Futuyma, D. J.; Slatkin, M. (ed.). Coevolution. Massachusetts: Sinauer. Passow, U.; Carlson, C. A. (2012). «The biological pump in a high CO2 world». Mar. Ecol. Progr. Ser., 470: 249-272. Proctor, L. M.; Fuhrman, J. A. (1990). «Viral mortality of marine bacteria and cianobacteria». Nature, 343: 60-62.
Simó, R. (2001). «Production of atmospheric sulfur by oceanic plankton: Biogeochemical, ecological and evolutionary links». Trends Ecol. Evol., 16: 287-294. Steward, G. F. [et al.] (1996). «Abundance and production of bacteria and viruses in the Bering and Chukchi seas». Mar. Ecol. Prog. Ser., 131: 287-300. DOI: 10.3354/ meps131287. Suttle, C. A. (2005). «Viruses in the sea». Nature, 437: 356-361. — (2007). «Marine viruses — major players in the global ecosystem». Nat. Rev. Microbiol., 5: 801-812. Thingstad, T. F. (2000). «Elements of a theory for the mechanisms controlling abundance, diversity, and biogeochemical role of lytic bacterial viruses in aquatic systems». Limnol. Oceanogr., 45: 13201328. Thingstad, T. F.; Bratbak, G. (2016). «Viral strategies at sea». Nature, 531: 454-455. Weinbauer, M. G. [et al.] (2002). «Reconsidering transmission electron microscopy based estimates of viral infection of bacterioplankton using conversion factors derived from natural communities». Aquat. Microb. Ecol., 27: 103-110. — (2003). «Lysogeny and virus-induced mortality of bacterioplankton in surface, deep, and anoxic marine waters». Limnol. Oceanogr., 48: 1457-1465. Weinbauer, M. G.; Peduzzi, P. (1995). «Significance of viruses versus heterotrophic nanoflagellates for controlling bacterial abundance in the northern Adriatic Sea». J. Plankton Res., 17: 1851-1856. Weinbauer, M. G.; Rassoulzadegan, F. (2004). «Are viruses driving microbial diversification and diversity?». Environ. Microbiol., 6: 1-11. Weitz, J. S. [et al.] (2013). «Phage-bacteria infection networks». Trends Microbiol., 21: 82-91. — (2017). «Lysis, lysogeny and virus-microbe ratios». Nature, 549. DOI: http://dx.doi.org/10.1038/ nature23295. Wilhelm, S. W. [et al.] (2017). «A Student’s Guide to Giant Viruses Infecting Small Eukaryotes: From Acanthamoeba to Zooxanthellae». Viruses, 9: 46. <https://doi.org/10.3390/v9030046>.
Treballs de la Societat Catalana de Biologia, 70: 4-7
7
Conclusions
Bibliografia Alrasheed, H. [et al.] (2019). «Caution in inferring viral strategies from abundance correlations in marine metagenomes». Nat. Comm., 10: 501. DOI: 10.1038/ s41467-018-07950-z. Azam, F. [et al.] (1983). «The ecological role of water-column microbes in the sea». Mar. Ecol. Prog. Ser.,10: 257-263. Boras, J. A. [et al.] (2009). «Annual changes of bacterial mortality due to viruses and protists in an oligotro phic coastal environment (NW Mediterranean)». Environ. Microbiol., 11: 1181-1193. Bergh, Ø. [et al.] (1989). «High abundance of viruses found in aquatic environments». Nature, 340: 467468. Breitbart, M. (2012). «Marine viruses: Truth or dare». Annu. Rev. Mar. Sci., 4: 425-448. Breitbart, M.; Rohwer F. (2005). «Here a virus, there a virus, everywhere the same virus?». Trends in Microbiology, 13 (6): 278-284. Brum, J. R. [et al.] (2013). «Global morphological analysis of marine viruses shows minimal regional variation and dominance of non-tailed viruses». ISME J., 7: 1738-1751. Brüssow, H. (2007). «Bacteria between protists and phages: From antipredation strategies to the evolution of pathogenicity». Mol. Microbiol., 65: 583-589. DOI: 10.1111/j.1365-2958.2007.05826.x. Dall’Osto, M. [et al.] (2017). «Antarctic sea ice region as a source of biogenic organic nitrogen in aerosols». Sci. Rep., 7: 6047. DOI: 10.1038/s41598-017-06188-x. Fenchel, T. (1988). «Marine plankton food chains». Ann. Rev. Ecol. Syst., 19: 19-38. Fuhrman, J. A. (1999). «Marine viruses and their biogeochemical and ecological effects». Nature, 399: 541-548. Hargreaves, K. R. [et al.] (2014). «Bacteriophage behavioural ecology: How phages alter their bacterial host’s habits». Bacteriophage, 4: e29866. Heinze, C. [et al.] (2015). «The ocean carbon sink: Impacts, vulnerabilities and challenges». Earth Syst. Dynam., 6: 327-358. DOI: 10.5194/esd-6-327-2015. Hill, R. W. [et al.] (1998). Virus-mediated total release of dimethylsulfoniopropionate from marine phyto-
Revista TSCB 70.indd 7
30/3/21 14:14
Un mar microbià Maria Montserrat Sala
DOI: 10.2436/20.1501.02.185
Institut de Ciències del Mar (ICM-CSIC)
ISSN (ed. impresa): 0212-3037
Correspondència: Maria Montserrat Sala. Institut de Ciències del Mar (ICM-CSIC). Passeig Marítim de la Barceloneta, 37-49. 08003 Barcelona. Adreça electrònica: msala@icm.csic.es.
http://revistes.iec.cat/index.php/TSCB
ISSN (ed. digital): 2013-9802 Rebut: 27/03/2019 Acceptat: 29/07/2019
Resum
A microbial sea
Els oceans cobreixen aproximadament el 71 % de la superfície terrestre i, amb una mitjana de 3,4 km de fondària, representen l’hàbitat més gran per a la vida. Quan pensem en aquesta vida marina, de seguida ens venen al cap tot un seguit d’organismes, tant animals com plantes de mida gran. En realitat, però, els organismes que predominen al mar són invisibles als ulls, el 90 % dels organismes marins són microorganismes. De fet, si agafem una culleradeta d’aigua de qualsevol ambient, sigui polar, tropical, costaner, de mar obert, etc., típicament trobarem que aquest conté deu milions de virus, un milió de bacteris, cent mil arqueus i deu mil microeucariotes. Els microorganismes marins, però, no són únicament importants per la seva enorme abundància i ubiqüitat, sinó també pel paper fonamental que tenen en els cicles biogeoquímics al mar. Aquesta revisió vol donar a conèixer els microorganismes marins, els seus components, la seva funció a l’oceà, i els reptes en el seu coneixement que afronten els científics en aquest segle.
Summary
Paraules clau: bacteris, virus, arqueus, diversitat, funció, canvi global i microplàstics.
Ja al 1845, Charles Darwin va explicar en una de les seves cartes la seva sospita de la existència de microorganismes al mar, ja que haurien de servir com a aliment als «infusoris» que observava en microscopis rudimentaris a les mostres recollides als mars per on navegava. Des dels temps de Darwin, el coneixement dels microorganismes marins ha avançat enormement, en paral·lel al de les tècniques en microscòpia, biologia molecular, bioquímica i oceanografia. Aquest treball mostra una revisió dels coneixements actuals sobre els microorganismes marins, i exposa alguns reptes de futur que planteja el seu estudi.
1. Qui són els microorganismes marins Dins del terme microorganismes marins s’inclou tot un seguit de grups molt diversos tant pel que fa a la taxonomia com a la funció que tenen. Típicament en formen part organismes de mida inferior a deu micres pertanyents a grups taxonòmicament tan diferents com virus, bacteris, arqueus o eucariotes. De fet, una de les característiques més importants dels microorganismes marins és la seva gran diversitat. Les noves tècniques moleculars, com la seqüenciació del gen 16S rRNA, han revolucionat el camp de l’ecologia microbiana i han donat estimacions de milers d’OTUS (unitats
8
Revista TSCB 70.indd 8
Oceans cover approximately 71 % of the Earth’s surface and, with an average depth of 3.4 km, they are the largest habitat for life. When we talk of marine life, we quickly think of large organisms, including both animals and plants. The fact is that the predominant organisms in the sea are invisible to the naked eye: 90 % of all marine organisms are microorganisms. Indeed, if we take a spoonful of seawater from any environment, i.e. polar, tropical, coastal, open sea, etc., we typically find about 10 million viruses, 1 million bacteria, 100,000 archaea and 10,000 microeukaryotes. Marine microorganisms, however, are not only important because of their great abundance and ubiquity, but because they play a key role in marine biogeochemical cycles. This review briefly introduces marine microorganisms, their components and their function, together with some of the challenges that scientists face in their study in this century.
Keywords: bacteria, virus, archaea, diversity, function, global change, microplastics.
taxonòmiques operacionals, l’equivalent a espècie) per litre. La gran diversitat, junt amb les diferents característiques ecològiques i les preferències ambientals fan que els microorganismes hagin estat capaços de colonitzar qualsevol nínxol a l’oceà. En aquest article ens centrarem sobretot en els procariotes i virus.
1.1. Virus Els virus són les partícules biològiques més abundants de l’oceà (amb un rang des de 3×10⁶ virus ml-1 al mar profund fins a 108 virus ml-1 en aigües riques, Suttle, 2005). A més, els virus són el reservori de diversitat genètica més gran de la Terra, la qual cosa els dona la capacitat de poder infectar qualsevol organisme marí, des de plantes fins a balenes, tot i que la major part dels virus marins infecten bacteris. Malgrat ser minúsculs, els virus tenen un paper clau a l’oceà per la seva regulació de l’abundància de certes espècies, l’intercanvi de material genètic entre espècies i per l’alteració en els cicles biogeoquímics degut a l’alliberament de matèria orgànica i nutrients que comporta la lisi cel·lular (Fuhrman, 1999). 1.2. Arqueus o arqueobacteris Els arqueus són, com els bacteris, microorganismes unicel·lulars procariotes (sense nucli ni orgànuls) i, de fet, abans eren considerats un tipus
de bacteris. Avui en dia, però, se sap que la seva història evolutiva és independent i dins el sistema de tres dominis presentat per Carl Woese (Woese et al., 1990), les tres branques evolutives principals corresponen als bacteris, els eucariotes i els arqueus. Respecte a la distribució, abans es creia que els arqueus eren microorganismes extremòfils i la seva distribució se centrava en ambients extrems de temperatura, salinitat o anòxia, com les fonts hidrotermals. Ara sabem, però, que són microorganismes ubics al mar (DeLong, 1992) i que, en alguns casos, poden arribar a ser inclús dominants al fons de l’oceà (Karner et al., 2001, Santoro et al., 2019).
1.3. Bacteris Els bacteris han estat capaços de colonitzar tot tipus de nínxols al mar, la qual cosa és indicativa de la seva enorme diversitat. Hi ha, però, alguns bacteris que trobem en molts llocs de l’oceà. El bacteri més abundant als oceans (25-50 % del total) és el SAR11 i pertany al grup Alphaproteobacteria (Giovannoni i Rappé, 2000). Es tracta d’un bacteri molt petit i capaç de viure en condicions oligotròfiques, molt pobres en nutrients i matèria orgànica. La seva estratègia per sobreviure en les baixes concentracions de nutrients que hi ha al mar, i que es poden assemblar a les d’un desert, és tenir un genoma
Treballs de la Societat Catalana de Biologia, 70: 8-11
29/3/21 14:57
Un mar microbià
extremament petit, sense algunes funcions que podríem pensar que són bàsiques per als bacteris marins, i utilitzar estratègies per minimitzar els requeriments de carboni per poder-se replicar en condicions mínimes de nutrients. En aigües més riques, com són les aigües costaneres, o en situacions de proliferacions algals on hi ha molta matèria orgànica disponible, les comunitats bacterianes estan dominades per uns altres tipus de bacteris com Roseobacter o el grup Flavobacteria. Els genomes d’aquests bacteris, a diferència del de SAR11, són grans i proporcionen a les cèl·lules una flexibilitat metabòlica i unes estratègies d’adquisició de carboni i energia molt variades, la qual cosa els permet explotar un ampli ventall de nínxols ecològics i sobreviure en diferents condicions ambientals (Moran et al., 2007). Altres bacteris marins de gran significació tant per l’abundància com per la importància ecològica són els cianobacteris, principalment Prochlorococcus i Synechococcus. Els cianobacteris sovint representen un elevat percentatge de la comunitat bacteriana en la part superficial de l’oceà (fins a 100-150 m). Prochlorococcus en concret és l’organisme fotòtrof més abundant de la Terra, i responsable d’una fracció significativa de la fotosíntesi a l’oceà, especialment a les regions tropicals oceàniques on domina (Chisholm et al., 1988). L’altre cianobacteri, Synechococcus, en canvi, és més cosmopolita i es
pot trobar en elevades concentracions en aigües costaneres (Waterbury et al., 1979).
2. Funció dels microorganismes marins Els microorganismes marins controlen, amb la seva activitat, la renovació de nutrients i carboni que finalment regula els principals cicles biogeoquímics a l’oceà. Els microorganismes fotòtrofs, que inclouen els cianobacteris a més del fitoplàncton eucariòtic, s’encarreguen de fixar CO2 utilitzant la llum del sol i convertir-lo en biomassa viva, de manera similar a com ho fan les plantes. De fet, la meitat de la producció primària del planeta té lloc a l’oceà, i d’aquesta, el 90 % la fan els microorganismes (Duarte i Cebrián, 1996). La fixació de carboni que duen a terme els microorganismes fotòtrofs representa un 40 % de la fixació del carboni global al planeta, malgrat que en termes de biomassa els microorganismes fotòtrofs representin només al voltant d’un 1 % de la biomassa de les plantes terrestres. Aquest carboni que ha estat fixat fotosintèticament pot seguir després diferents vies (vegeu la figura 1). Una part pot ser transferida a nivells superiors de la xarxa tròfica marina per la via de la depredació per part del zooplàncton, que posteriorment pot ser consumit pels peixos. Una altra part pot ser transferida en forma d’exsudats de carboni orgànic dissolt (DOC) a
Oceà superficial
CO 2
Fitoplàncton i cianobacteris
Zooplàncton
Peixos
POC Sedimentació
Oceà profund
Protozous DOC
POC
DOC
Virus
Bacteris i arqueus
RDOC Sediment
Figura 1. Estructura microbiana de l’ecosistema marí. Modificada a partir d’Azam i Malfatti, 2007. DOC: carboni orgànic dissolt; POC: carboni orgànic particulat; RDOC: carboni orgànic recalcitrant.
Treballs de la Societat Catalana de Biologia, 70: 8-11
Revista TSCB 70.indd 9
l’aigua. Una fracció d’aquest carboni en forma de DOC alliberat a l’aigua pot ser, llavors, utilitzada pels bacteris heteròtrofs i transferida a la cadena tròfica mitjançant la via anomenada bucle microbià (Azam et al., 1983), en la qual els bacteris heteròtrofs que han incorporat el DOC de l’aigua són consumits per protozous, que després són consumits per zooplàncton més gran, i és la via cap a nivells tròfics superiors. Els virus, principalment els bacteriòfags (els que infecten els bacteris), s’incorporen a aquesta xarxa alliberant DOC amb la lisi dels bacteris infectats i, al mateix temps, aquest DOC alimenta els bacteris restants, i es crea així un cicle d’alliberament i consum de DOC (Fuhrman, 1999). A part del carboni que es canalitza a través de la xarxa tròfica o del bucle microbià en forma de DOC, una fracció significativa del carboni sedimenta cap al fons del mar en forma de partícules de carboni orgànic particulat (POC), provinents de fitoplàncton senescent o de detritus d’organismes, seguint el procés anomenat bomba de carboni biològica (biological carbon pump). Aquest POC que s’havia creat en forma de biomassa a la superfície de l’oceà pot arribar als sediments del fons marí (que poden estar fins a més de 6.000 m de fondària) on quedarà segrestat durant mil·lennis. Aquest flux de sedimentació de POC comporta un segrest de tres-cents milions de tones de carboni cada any al fons del mar. Degut al potencial de segrest de carboni del flux de sedimentació, es va plantejar la possibilitat d’augmentar aquest flux per reduir les concentracions de CO2 a l’atmosfera i així mitigar els efectes del canvi climàtic. La principal mesura assajada va ser l’addició de ferro en zones del mar pobres en aquest nutrient per estimular el creixement de les algues i així la conversió de CO2 en POC en forma de fitoplàncton i la consegüent sedimentació i segrest de carboni al fons del mar. Es van portar a terme més d’una desena de campanyes oceanogràfiques internacionals amb el propòsit de fertilitzar amb ferro regions oceàniques pobres, però els resultats no mostren un augment clar del flux i, a més, la fertilització va plantejar qüestions ètiques entre els científics. Aquest fons marí (a partir de 1.000 m) on arriben les partícules, el podem imaginar com un desert on no arriba la llum per fer la fotosíntesi i que està gairebé només ocupat per microorganismes que viuen en condicions dures de baixa temperatura, alta pressió i escassetat de carboni làbil. Els bacteris del fons del mar depenen altament, doncs, de la matèria orgànica de les partícules que es formen a la superfície i que cauen fins a aquestes fondàries. Les
9
29/3/21 14:57
Maria Montserrat Sala
aportacions de matèria orgànica a aquestes fondàries poden fer que microorganismes que es troben en estat latent puguin arribar a activar-se (Sebastián et al., 2018). A més, com s’ha vist recentment, aquestes partícules, a part de contenir matèria orgànica, porten també microorganismes de la capa superior de l’oceà, que poden servir com a inòcul al fons del mar i créixer en aquestes inhòspites fondàries (Mestre et al., 2018). Abans que el carboni acabi segrestat als sediments durant mil·lennis, els bacteris heteròtrofs del fons marí en metabolitzen una part significativa a la columna d’aigua i el retornen a la xarxa tròfica, on es transforma en CO2 mitjançant la respiració. Recents estudis, però, mostren que no tot el carboni del fons marí és respirat, sinó que una part important es converteix en DOC refractari, RDOC (no utilitzable pels organismes). Aquest procés, anomenat bomba de carboni microbiana (microbial carbon pump), fa que el DOC refractari quedi segrestat, ja que no pot ser utilitzat pels microorganismes, i pugui ser emmagatzemat durant milions d’anys (Jiao et al., 2010).
3. Reptes de futur en l’estudi dels microorganismes marins 3.1. Processament de dades «-òmiques» El neologisme anglès omics fa referència als camps d’estudi que inclouen les paraules acabades en «-òmica» com són la genòmica (estudi dels genomes) la proteòmica (estudi de les proteïnes) i la metabolòmica (estudi dels metabòlits), que s’utilitzen per caracteritzar les molècules que es tradueixen en estructura, funció i dinàmica dels organismes. L’arribada de tècniques moleculars com la seqüenciació d’alt rendiment, la proteòmica o la metabolòmica ens permet catalogar la diversitat dels microorganismes amb un nivell de detall extraordinari. El que ara ens cal és processar l’allau de dades obtingudes i utilitzar aquest coneixement per poder entendre la dinàmica i la funció de les comunitats microbianes i les seves interaccions (Gasol i Kirchman, 2018). 3.2. Nous hàbitats per explorar Tot i que les zones costaneres són aquelles de les quals disposem de més informació, amb el millor accés a vaixells oceanogràfics cada cop tenim dades de més zones i inclús de campanyes que han donat la volta al món fent una circumnavegació de l’oceà com la Malaspina 2010 (Duarte, 2015). Queden encara, però, hàbitats, dels microorganismes dels quals tenim poca informació. El mar profund és molt probable-
10
Revista TSCB 70.indd 10
ment l’ecosistema més gran de la Terra, que ha estat, però, molt poc estudiat, possiblement perquè és molt més difícil prendre-hi mostres. Les seves condicions d’absència de llum, baixa temperatura, altes pressions i baixes concentracions de carboni làbil fan que sigui un ambient molt inhòspit, on gairebé només sobreviuen bacteris, arqueus, virus i microeucariotes (Arístegui, 2009). D’altres ecosistemes com els sediments, les fonts hidrotermals o fins i tot els microbiomes d’animals són hàbitats encara molt desconeguts que caldrà explorar en les properes dècades.
3.3. Resposta al canvi climàtic Els microorganismes que governen els canvis biogeoquímics de l’oceà s’estan enfrontant a tota una sèrie de canvis antropogènics sense precedent (Hutchins i Fu, 2017), principalment un augment de la temperatura de l’aigua i una disminució del seu pH per l’augment del CO2 atmosfèric. Els efectes de l’increment de temperatura sobre la vida marina, ja siguin directes o indirectes, són molts i provoquen principalment el desplaçament d’espècies que viuen a baixes latituds o canvis fisiològics dels organismes. Quant als microorganismes, sembla que l’augment de temperatura de l’aigua del mar farà que creixi la contribució de productors primaris de mida petita (Morán et al., 2010) i potser també la d’alguns patògens, com és el cas del bacteris del gènere Vibrio (Vezulli et al., 2012). L’augment del CO2 atmosfèric que comporta el canvi climàtic està causant l’acidificació dels oceans i la consegüent baixada del pH. Els efectes de l’increment de CO2 sobre els microorganismes són encara poc clars i poden dependre de diferents factors, però els més evidents són l’efecte negatiu sobre els microorganismes amb coberta calcària, que es dissol a pH baixos, com els cocolitofòrids (Riebesell et al., 2000, Hofmann et al., 2010), i l’augment de la producció primària (Riebesell, 2004). De moment, però, els experiments d’acidificació han durat només setmanes o mesos (vegeu, per exemple, Sala et al., 2016) i sabem que els microorganismes tenen la capacitat d’aclimatar-se en condicions ambientals canviants, de manera que són necessaris experiments de més llarga durada per tal de poder extreure conclusions realistes i, especialment, que combinin diferents d’aquests factors (vegeu Vaqué et al., 2019). El repte dels microbiòlegs marins serà predir com s’expressarà la resposta dels microorganismes marins al conjunt de canvis que pro-
voqui el canvi climàtic, així com les seves interaccions, en funció de la biogeografia, l’estructura de la comunitat i l’alteració dels cicles biogeoquímics.
3.4. Microorganismes i microplàstics Darrerament, la societat ha pres consciència de la gravetat de la contaminació amb plàstics al mar i s’estan portant a terme moltes iniciatives per mirar de reduir-la. La major part de plàstics que es troben al mar, però, són microplàstics (partícules de plàstic de mida inferior a 5 mm). La difusió d’aquests microplàstics té lloc tant de forma directa, (en exfoliants, dentífrics, abrasius industrials), com de forma indirecta, provinents de la degradació de macroplàstics (Andrady, 2011). La concentració de microplàstics és cada vegada més elevada; segons algunes prediccions es doblarà en deu anys (Isobe et al., 2019) i la seva presència sembla universal al mar (sediments, platges, fons del mar, etc.). Sabem que els microplàstics poden tenir efectes sobre la fauna marina (Paul-Pont, 2018) i, a través del seu consum, poden arribar als humans i causar- los efectes nocius per l’absorció dels contaminants que contenen. Quant als microorganismes marins, però, sembla que els microplàstics tenen un efecte estimulador del creixement bacterià degut a l’alliberament de carboni orgànic dissolt directament del plàstic (Romera-Castillo et al., 2018). A més, la superfície del plàstic és un nínxol important per als microorganismes, que fa que el colonitzin tot tipus de microorganismes, la qual cosa dona lloc a l’anomenada «plastisfera» (Zettler et al., 2013). Degut al fet que són molt menys biodegradables que moltes de les altres partícules al mar, els microplàstics són un vehicle de transport entre ecosistemes que pot afavorir la propagació de microorganismes patògens i la introducció d’espècies invasores. La identificació, l’aïllament i el creixement en bioreactors de microorganismes que siguin capaços d’accelerar la biodegradació dels microplàstics (Yoshida et al., 2016) es planteja com a repte científic de futur per contribuir a la reducció de plàstics del planeta. Com va dir Louis Pasteur, microbiòleg francès del segle xix, «la vida no seria possible en absència dels microorganismes». Això és ben cert també al mar, on precisament va començar la vida, i on els microorganismes tenen un paper clau per la seva influència sobre el clima del planeta, la seva funció principal com a productors primaris i com a reguladors dels fluxos d’energia i matèria a l’oceà.
Treballs de la Societat Catalana de Biologia, 70: 8-11
29/3/21 14:57
Un mar microbià
Bibliografia Andrady, A. L. (2011). «Microplastics in the marine environment». Mar. Pollut. Bull., 62: 1596-1605. Arístegui, J. [et al.] (2009). «Microbial oceanography of the dark ocean’s pelagic realm». Limnology and Oceanography, 54: 1501-1529. Azam, F. [et al.] (1983). «The ecological role of water-column microbes in the sea». Mar. Ecol. Prog. Ser., 10: 257-263. Azam, F.; Malfatti, F. (2007). «Microbial structuring of marine ecosystems». Nat. Rev. Micro., 5: 782-791. Chisholm, S.W. [et al.] (1998). «A novel free-living prochlorophyte abundant in the oceanic euphotic zone». Nature, 334: 340-343. DeLong, E. F. (1992). «Archaea in coastal marine environments». Proc. Natl. Acad. Sci. USA, 89: 5685-5689. Duarte, C. M. (2015). «Seafaring in the 21st century: The Malaspina 2010 circumnavigation expedition». Limnol. Oceanogr. Bull., 24: 11-14. Duarte, C. M.; Cebrián J. (1996). «The fate of marine autotrophic production». Limnology and Oceanography, 41: 1758-1766. Fuhrman, J. A. (1999). «Marine viruses and their biogeochemical and ecological effects». Nature, 399: 541548. Gasol, J. M.; Kirchman, D. L. (2018). «The evolution of microbial ecology of the ocean». A: Gasol, J. M.; Kirchman, D. L. (ed.). Microbial ecology of the oceans. Nova Jersey: Wiley-Blackwell. Giovannoni, S. J.; Rappé, M. S. (2000). «Evolution, diversity, and molecular ecology of marine prokaryotes». A: Kirchman, D. L. (ed.). Microbial ecology of the oceans. Nova York: Wiley-Liss, 47-84. Hofmann, G. [et al.] (2010). «The effect of ocean acidification on calcifying organisms in marine ecosystems:
An organism-to-ecosystem perspective». Ann. Rev. Ecol. Evol. System., 41: 127-147. Hutchins, D. A.; Fu, F. (2017). «Microorganisms and ocean global change». Nat. Microbiol., 2: 17058. Isobe, A. [et al.] (2019). «Abundance of non-conservative microplastics in the upper ocean from 1957 to 2066». Nat. Comm., 10: 417. Jiao, N. [et al.] (2010). «Microbial production of recalcitrant dissolved organic matter: Long-term carbon storage in the global ocean». Nat. Rev. Microbiol., 8: 593-599. Karner, M. B. [et al.] (2001). «Archaeal dominance in the mesopelagic zone of the Pacific». Nature, 409: 507510. Mestre, M. [et al.] (2018). «Sinking particles promote vertical connectivity in the ocean microbiome». Proc. Nat. Acad. Sci. USA., 115: E6799-E6807. Moran, M. A. [et al.] (2007). «Ecological genomics of marine Roseobacters». Appl. Environ. Microbiol., 73: 4559-4569. Morán X. A. G. [et al.] (2010). «Increasing importance of small phytoplankton in a warmer ocean». Global Change Biol., 16: 1137-1144. Paul-Pont, I. [et al.] (2018). «Constraints and priorities for conducting experimental exposures of marine organisms to microplastics». Front. Mar. Sci., 5: 252. Riebesell, U. (2004). «Effects of CO2 enrichment on marine phytoplankton». J. Oceanogr., 60: 719-729. Riebesell, U. [et al.] (2000). «Reduced calcification of marine plankton in response to increased atmospheric CO2». Nature, 407: 364-367. Romera-Castillo, C. [et al.] (2018). «Dissolved organic carbon leaching from plastics stimulates microbial activity in the ocean». Nat. Comm., 9: 1430.
Treballs de la Societat Catalana de Biologia, 70: 8-11
Revista TSCB 70.indd 11
Sala, M. M. [et al.] (2016). «Contrasting effects of ocean acidification on the microbial food web under different trophic conditions». ICES Journal of Marine Science, 73: 670-679. Santoro, A. E. [et al.] (2019). «Planktonic marine archaea». Ann. Rev. Mar. Sci., 11: 131-158. Sebastián, M. [et al.] (2018). «Deep ocean prokaryotic communities are remarkably malleable when facing long-term starvation». Environ. Microbiol., 20: 713723. Seymour, J. R. (2014). «A sea of microbes: The diversity and activity of marine microorganisms». Microbiology Australia, 35: 183-187. Suttle, C. A. (2005). «Viruses in the sea». Nature, 7057: 356-361. Vaqué, D. [et al.] (2019). «Warming and CO2 enhance Arctic heterotrophic microbial activity». Front. Microb., 10: 494. Vezulli, L. [et al.] (2012). «Long-term effects of ocean warming on the prokaryotic community: Evidence from the vibrios». ISME J., 6: 21-30. Waterbury, J. B. [et al.] (1979). «Widespread occurrence of a unicellular, marine, planktonic, cyanobacterium». Nature, 277: 293-294. Woese, C. R. [et al.] (1990). «Towards a natural system of organisms: Proposal for the domains Archaea, Bacteria and Eucarya». Proceedings of the National Academy of Science USA, 87: 4576-4579. Yoshida, S. [et al.] (2016). «A bacterium that degrades and assimilates poly(ethylene terephtalate)». Science, 351: 1196-1199. Zettler, E. R. [et al.] (2013). «Life in the “plastisphere”: Microbial communities on plastic marine debris». Environ. Sci. Tech., 47: 7137-7146.
11
29/3/21 14:57
Petits depredadors marins Ramon Massana
DOI: 10.2436/20.1501.02.186 ISSN (ed. impresa): 0212-3037
Institut de Ciències del Mar (ICM-CSIC)
ISSN (ed. digital): 2013-9802
Correspondència: Ramon Massana. Institut de Ciències del Mar (ICM-CSIC). Passeig Marítim de la Barceloneta, 3749. 08003 Barcelona. Adreça electrònica: ramonm@icm.csic.es.
http://revistes.iec.cat/index.php/TSCB Rebut: 01/04/2019 Acceptat: 30/04/2019
Resum
Small marine predators
Una de les grans transicions en l’evolució de la vida fou quan un organisme unicel·lular va aprendre a menjar-ne un altre, fet que va permetre l’establiment de les xarxes tròfiques i la formació d’organismes i ecosistemes més complexos. La majoria d’eucariotes unicel·lulars actuals han mantingut la capacitat depredadora ancestral i tenen un gran protagonisme en les xarxes tròfiques marines, on bona part de la producció primària i secundària és microbiana. Els depredadors més petits d’aquests ecosistemes, eucariotes unicel·lulars sense pigments i amb flagel, són els agents principals de la mortalitat de procariotes marins, són preses per a nivells tròfics superiors i tenen un paper clau en la remineralització de nutrients inorgànics. En aquest treball exposarem què sabem d’aquest grup de depredadors des d’un punt de vista ecològic i evolutiu: qui són, quants n’hi ha i què fan. Aquest component essencial dels sistemes marins comença a estar ben caracteritzat.
Summary
Paraules clau: depredació, diversitat, fagocitosi, flagel·lats heteròtrofs, estramenòpils marins.
One of the major transitions in the evolution of life was when one unicellular organism learned to eat another, allowing the establishment of food webs and the formation of complex organisms and ecosystems. Most unicellular eukaryotes known today have maintained this ancestral predation capacity and are very important players in marine food webs, where a large share of primary and secondary production is due to microbes. The smallest predators in marine ecosystems, unicellular colorless flagellated eukaryotes, are the principal agents of prokaryotic mortality and potential prey for upper trophic levels, playing a key role in the remineralization of inorganic nutrients. Here we will review our knowledge of this assemblage of small predators from an ecological and evolutionary perspective, looking at who they are, their numbers and what they do. This essential component of marine systems is beginning to be well characterized in our times.
Keywords: predation, diversity, phagocytosis, heterotrophic flagellates, marine stramenopiles.
Introducció La depredació és un fenomen natural que sempre ens ha atret i fascinat (vegeu la figura 1). A grans trets, agrupem els organismes d’un ecosistema en productors primaris (les plantes), herbívors (que mengen plantes), depredadors (que mengen preses vives) i carronyaires (que s’alimenten de matèria orgànica no viva). La depredació seria doncs un animal menjant-se’n un altre per obtenir-ne els recursos per a viure, créixer i reproduir-se. El primer que ens ve al cap podria ser la sabana africana, on grups de lleones es preparen per a assetjar un ramat de zebres, en cacen alguna i se la mengen. Altres casos ben carismàtics serien l’àliga imperial, au rapinyaire que caça conills, o el tauró blanc caçant tonyines. En una altra escala menys vistosa hi trobaríem gripaus menjant cucs, o libèl·lules menjant insectes. A nivell històric, la depredació que ha dut a terme l’espècie humana ha estat la responsable de la desaparició de grans mamífers terrestres com els mamuts fa unes poques desenes de milers d’anys (Johnson, 2002) i de retruc l’extinció també dels seus depredadors, com els dents de sabre. En els darrers segles, la pesca massiva d’animals marins ha provocat també l’extinció o gran davallada de les seves poblacions. Clarament, la depredació ha estat i
12
Revista TSCB 70.indd 12
és una interacció biològica fonamental i estructuradora de la majoria d’ecosistemes i que ha generat molts estudis per a entendre’n els mecanismes, les relacions concretes entre depre-
dador i presa, i els costos i beneficis d’aquesta interacció tròfica (Dawkins i Krebs, 1979). En paral·lel a aquesta realitat que percebem intuïtivament hi ha un món microbià que
Figura 1. Exemples de depredació per diferents classes d’animals (mamífer, au, amfibi i insecte) dins del món macroscòpic i observable. Imatges extretes de Wikimedia Commons (a dalt, esquerra); Free Range Stock (a dalt, dreta); Pixabay (a baix, esquerra), i FreeIMG (a baix, dreta).
Treballs de la Societat Catalana de Biologia, 70: 12-17
29/3/21 14:58
Petits depredadors marins
ens és invisible i que és fonamental en molts aspectes ecològics i evolutius. Efectivament, la vida aparegué i evolucionà majoritàriament en formes microbianes, i gran part de la biodiversitat existent avui dia és microscòpica. Els microorganismes també són essencials per a entendre la construcció i el funcionament dels ecosistemes: representen la majoria dels éssers vius de qualsevol hàbitat i sovint també n’expliquen la major part de la biomassa i activitat (Falkowski et al., 2008). En concret, suspesos a l’aigua de mar hi viuen milions de microorganismes que, en termes de producció primària, respiració i cicles biogeoquímics, són molt més importants que les carismàtiques balenes, tonyines o posidònies (DeLong, 2009). Aquesta comunitat microbiana, molt heterogènia en mides, formes, estructures i modes tròfics, també amaga un munt d’interaccions biològiques, i d’entre elles la depredació és una de les més interessants d’analitzar. Els microorganismes són generalment unicel·lulars, així doncs, els seus mecanismes de depredació són totalment diferents dels mecanismes dels lleons, guineus, gripaus i libèl·lules. La depredació portada a terme per organismes unicel·lulars s’anomena fagocitosi, i és la capacitat d’una cèl· lula de menjar-se’n una altra.
La depredació, una funció eucariota L’origen de la vida fou en forma de cèl·lula procariota, en aparèixer un organisme capaç d’emmagatzemar informació per a la seva conformació i activitat i de propagar aquesta informació a la seva descendència (Peretó, 2014). La cèl·lula procariota és petita (al voltant d’un micròmetre), té poca estructura interna i està generalment envoltada d’una coberta rígida. Durant més de la meitat de la història de la Terra, la vida va ser exclusivament procariota i es va diversificar en diferents maneres d’interaccionar amb l’entorn. Va aparèixer la capacitat d’utilitzar una gran varietat de compostos orgànics i inorgànics per a la nutrició i la respiració, es va inventar la fotosíntesi i van crear-se consorcis microbians en formes més o menys estables de simbiosi. En algun moment de l’evolució, fa uns mil vuit-cents milions d’anys (Parfrey et al., 2011), va aparèixer la cèl·lula eucariota per la combinació d’un arqueu que va proveir l’estructura cel·lular i un bacteri que va esdevenir el mitocondri, la màquina energètica d’aquest nou organisme. Hi ha hagut molts esforços per a intentar explicar com es va formar aquesta associació i darrerament s’han presentat dues
hipòtesis contraposades (Martin et al., 2017). Una diu que primer va aparèixer un arqueu que va aprendre a fagocitar i una de les preses es va escapar de la digestió per esdevenir el mitocondri (mitochondria late). L’altra parla d’una associació simbiòtica entre un arqueu i un bacteri (mitochondria early) que va aportar l’energia necessària per a les següents innovacions, incloent la capacitat de fagocitar. Sigui quina sigui la hipòtesi correcta, és clar que la depredació és un tret ancestral (fins i tot creador) de la cèl·lula eucariota. Els principals canvis cel·lulars que ho van permetre van ser la pèrdua de la coberta rígida externa, el desenvolupament d’un sistema d’endomembranes i la formació d’un citoesquelet de fibres proteiques capaç de promoure els vacúols digestius. El nou llinatge eucariòtic unicel·lular i depredador es va anar diversificant i, fruit d’un altre esdeveniment simbiòtic exitós fa uns mil doscents milions d’anys, va aparèixer el cloroplast, un cianobacteri també segrestat. La vida unicel·lular va continuar evolucionant i no va ser fins fa uns sis-cents milions d’anys que van aparèixer els primers organismes multicel·lulars en forma d’animals. Els animals van mantenir la capacitat de depredació però desenvolupant mecanismes totalment diferents, basats en teixits especialitzats per a la captura i digestió de les preses. A més, van mantenir la fagocitosi dins del sistema immunitari, principalment a càrrec dels glòbuls blancs o fagòcits, com a mecanisme de defensa davant de microorganismes patògens invasors.
1
Fagosoma
2
1. Captura de preses 2. Formació del fagosoma
Lisosoma
3
3. Fusió del lisosoma i el fagosoma 4. Diges�ó enzimà�ca 5. Excreció
Fagolisosoma
4
5
Figura 2. Representació esquemàtica de les diferents fases de la fagocitosi a càrrec d’un flagel·lat heteròtrof model: 1) captura de preses, 2) formació del fagosoma amb les preses dins, 3) fusió del fagosoma amb el lisosoma carregat d’enzims digestius per a formar el fagolisosoma, 4) digestió enzimàtica de les preses i absorció dels nutrients digerits, i 5) excreció dels productes no digerits per exocitosi (Adela Massana i Ramon Massana).
Treballs de la Societat Catalana de Biologia, 70: 12-17
Revista TSCB 70.indd 13
La fagocitosi té diferents fases ben diferenciades (vegeu la figura 2). Primerament hi ha el contacte del depredador amb la presa. En preses que viuen sobre substrats, aquest contacte pot donar-se per extrusions citoplasmàtiques del depredador, els pseudopodis, que acaben englobant les preses. En organismes que viuen suspesos a l’aigua, el contacte és afavorit pel moviment ondulatori d’un o més flagels que dirigeixen el depredador cap a la presa o bé que creen corrents d’alimentació per atraure les preses. En mecànica de fluids, l’escala microbiana es caracteritza per un predomini de la viscositat damunt les forces inercials, per la qual cosa el moviment de partícules i la seva captura és un fenomen poc intuïtiu i complicat de modelar (Fernandez et al., 2019). Després del contacte, la segona fase és la formació d’un vacúol digestiu, on participen les fibres del citoesquelet que tiben per crear una invaginació de la membrana citoplasmàtica amb la presa dins. Un cop format, aquest vacúol primari o fagosoma es comença ja a acidificar. La tercera fase consisteix en la fusió del fagosoma amb el lisosoma, que conté els enzims digestius i acaba d’acidificar el compartiment. Aquesta fusió genera el fagolisosoma, que és on s’esdevé la digestió i on es dona el moviment dels nutrients digerits cap al citoplasma per difusió o per transport actiu. La darrera fase de la fagocitosi és el reciclatge dels enzims digestius, la fusió del fagolisosoma amb la membrana nuclear i l’excreció del material no digerit per exocitosi. El coneixement
13
29/3/21 14:58
Ramon Massana
de la maquinària estructural i enzimàtica que participa en la fagocitosi s’ha obtingut mitjançant la purificació i anàlisi de proteïnes de vacúols digestius en diferents fases de maduració (Boulais et al., 2010). Molts estudis s’han fet amb cèl·lules del sistema immunitari d’animals, però també s’hi han inclòs eucariotes unicel·lulars. D’altra banda, la identificació dels gens responsables d’un mode de vida fagòtrof s’ha dut a terme mitjançant genòmica comparada entre espècies d’eucariotes amb diferents capacitats tròfiques (Burns et al., 2018).
Depredació microbiana al mar, amb èmfasi en els més petits Amb la invenció dels primers microscopis de grans augments al segle xvii, i sobretot amb els nous aparells del segle xix, es va iniciar l’observació del món microbià i es va detectar una gran varietat de microorganismes eucariotes suspesos a l’aigua de mar. Junt amb les vistoses i intricades diatomees, component essencial del plàncton fotosintètic marí, s’observaren també una gran diversitat d’eucariotes no pigmentats i sovint se’ls veia depredar altres microorganismes. Aquestes observacions queden plasmades d’una manera molt elegant en els dibuixos del científic i naturalista alemany Ernst Haeckel, que en el seu llibre del 1904 Kunstformen der Natur («Formes artístiques de la natura») dedica una làmina sencera, de les cent del llibre, a diferents grups d’eucariotes unicel·lulars depredadors: ciliats, dinoflagel·lats, acantaris i policistinis. Els dibuixos d’aquestes làmines contenen espècies ben catalogades avui dia i queda clar que no hi ha cap grup important, dins del rang de mides que es podia observar, que s’escapés de la identificació per part d’aquests primers microbiòlegs. Tanmateix, aquestes observacions encara obviaven un component essencial dels ecosistemes marins, del que tot i que se’n coneixia la presència no se n’imaginava la importància. Cap als anys setanta del segle xx, amb la utilització de microscopis d’epifluorescència, es van poder observar i quantificar bé els microorganismes marins més petits, en virtut de la seva fluorescència un cop tenyits i dipositats en filtres de membrana totalment plans. Aquesta fracció s’escapava de la microscòpia òptica estàndard, en part per no sedimentar bé i en part per ser transparents a la llum transmesa. Les primeres estimes de l’abundància de procariotes (bacteris i arqueus) planctònics van ser sorprenents: al voltant de 106 cèl·lules per mil·lilitre d’aigua de mar. Això resultava
14
Revista TSCB 70.indd 14
Figura 3. Fotografies de flagel·lats heteròtrofs, els depredadors més petits dels ecosistemes marins, observats per microscòpia òptica d’epifluorescència (dalt) i de contrast de fases (mig), i per microscòpia electrònica (baix). L’epifluorescència permet visualitzar l’organisme (imatges en blau) i avaluar si és pigmentat o no (els cloroplasts apareixen com a taques vermelles). Tots els organismes tenen una mida d’entre 2 i 10 μm. Imatges extretes del web Micro*scope i de diversos col·laboradors (Irene Forn, Javier del Campo i Hartmut Arndt).
ser superior en diversos ordres de magnitud als valors que es consideraven fins aquell moment, basats en recomptes de procariotes que formaven colònies en placa (Hobbie et al., 1977). Poc després, mitjançant experiments d’incorporació de precursors orgànics radio-
actius, es va demostrar que aquest component procariòtic, a més d’abundant, era també molt actiu (Fuhrman i Azam, 1980). Quedava doncs avaluar quin era el destí d’aquesta producció procariota tan important. Aviat es va trobar un altre component que havia passat desaper-
Treballs de la Societat Catalana de Biologia, 70: 12-17
29/3/21 14:58
Petits depredadors marins
cebut: petits eucariotes no pigmentats, al voltant de 103 cèl·lules per mil·lilitre, que depredaven els procariotes (Fenchel, 1982). Es tractava d’organismes amb una estructura cel·lular molt senzilla i de 2 a 5 µm de mida, que s’anomenaren flagel·lats heteròtrofs (vegeu la figura 3). Avui sabem que hi ha altres actors que participen en la mortalitat procariota al mar, com els flagel·lats pigmentats i els virus, però els flagel·lats heteròtrofs romanen com elements centrals d’aquesta mortalitat. La descoberta de la importància de procariotes i flagel·lats heteròtrofs en els ecosistemes marins va originar el concepte del bucle microbià (Azam et al., 1983): els procariotes planctònics creixen consumint matèria orgànica dissolta i s’incorporen a les xarxes tròfiques marines en ser depredats pels flagel·lats heteròtrofs, que al seu torn són preses de nivells tròfics superiors. Durant les dues dècades posteriors a la proposta del bucle microbià es van estudiar els procariotes i els flagel·lats heteròtrofs com dues caixes negres que interaccionaven, mirant la correlació de les seves abundàncies en sistemes contrastats i avaluant l’impacte de la depredació. Les taxes de depredació s’estimaven mesurant canvis d’abundància de procariotes en reduir l’impacte dels depredadors, o bé afegint preses marcades amb fluorescència i quantificant la seva ingestió dins dels depredadors per microscòpia. En general, els flagel·lats heteròtrofs marins mengen d’un a deu procariotes per hora i aquesta depredació és suficient per a compensar la producció procariota, amb desviacions clares en sistemes eutròfics on els virus són també importants (Jürgens i Massana, 2008). A més, aquesta depredació sembla exercir una forta pressió selectiva i pot condicionar la composició taxonòmica i fenotípica de les comunitats de procariotes (Pernthaler, 2005). Aquests treballs han estat essencials per a entendre el paper dels procariotes i els seus depredadors en l’ecosistema marí, però no tenen en compte el fet que cada caixa negra pot estar formada per espècies diferents, cada una d’elles amb la seva potencialitat funcional i per tant amb diferents impactes ecològics. Estudis fets amb flagel·lats heteròtrofs cultivats, on es mesuren les taxes i eficiències de creixement, les respostes funcionals i numèriques i l’espectre de preses, han evidenciat aquestes diferències funcionals entre espècies (Eccleston-Parry i Leadbeater, 1994). Tanmateix, no se sabia si aquests cultius representaven les espècies dominants al mar. Altre cop, es necessitaven noves aproximacions metodològiques per a continuar avançant.
e ucariotes més petits ja van revelar els dos trets distintius d’aquestes comunitats: són molt diverses ja que estan formades per moltes espècies distribuïdes arreu de l’arbre de la vida i contenen un alt grau de novetat taxonòmica (Moon-van der Staay et al., 2001). Dins d’aquesta nova diversitat destacaven dos consorcis que eren molt rellevants en totes les mostres analitzades: els MAST (marine stramenopiles) i els MALV (marine alveolates). Estudis recents indiquen que moltes espècies de MALV són paràsits d’altres microeucariotes o de metazous marins (Chambouvet et al., 2008), fet que atorga una rellevància sorprenent al parasitisme en els ecosistemes marins, mentre que els MAST són principalment flagel·lats heteròtrofs (Massana et al., 2006). Hi ha divuit llinatges independents de MAST i d’alguns se’n coneix la distribució i la capacitat depredadora (vegeu la figura 4). Destaca el grup MAST-4, que té una distribució cosmo-
Noves maneres d’estudiar els petits depredadors marins: qui són i què fan? L’aplicació de tècniques moleculars ha representat una revolució en moltes disciplines científiques, també en el camp de l’ecologia microbiana, on ha permès obrir les caixes negres microbianes per descriure els seus components i estudiar-ne la funció. Això s’aconsegueix utilitzant gens marcadors de diversitat, el més popular dels quals és el gen que codifica l’RNA de la subunitat petita del ribosoma (16S rDNA en procariotes i 18S rDNA en eucariotes), que es pot extreure i seqüenciar a partir de comunitats naturals. L’ús d’aquest gen permet a més dissenyar una sonda específica de la seqüència ambiental i utilitzar-la mitjançant FISH (fluorescence in situ hybridization) per a marcar el microorganisme portador d’aquesta seqüència (Amann et al., 1995). Els estudis pioners que van adreçar la diversitat dels micro-
Ochrophyta
MAST-1
Pirsonia Peronosporomycetes Hyphochytriales Developayella MAST-1 MAST-23 MAST-2
Labyrinthulomycetes MAST-4 MAST-11
MAST-4
MAST-7 MAST-9 MAST-8 MAST-10 MAST-6 MAST-20 MAST-3 MAST-12 Blastocystis Placidida Bicosoecida MAST-16 MAST-24 MAST-22 MAST-25
0,2
Figura 4. Arbre filogenètic del supergrup estramenòpils on es troben els llinatges ambientals MAST enmig de grups heteròtrofs coneguts (triangles grisos). A la dreta, es mostren dues cèl·lules depredadores: en blau el nucli tenyit per DAPI, en carbassa el citoplasma tenyit per FISH i en groc els procariotes ingerits (uns vint en el MAST-1, només un en el MAST-4) (elaboració pròpia).
Treballs de la Societat Catalana de Biologia, 70: 12-17
Revista TSCB 70.indd 15
15
29/3/21 14:58
Ramon Massana
polita a la superfície dels oceans, on es troba amb una abundància mitjana de 50 cèl·lules ml-1 i explica el 16 % dels flagel·lats heteròtrofs (Mangot et al., 2018). La seva taxa de depredació és de 3 procariotes h -1 (Massana et al., 2009) que junt amb la seva abundància i distribució global el situen com un dels depredadors de procariotes més importants dels sistemes marins. Avui dia ens trobem enmig d’una segona revolució molecular deguda a l’increment extraordinari de la capacitat de seqüenciació del DNA. Així, mentre que els primers estudis de diversitat microbiana se centraven unes poques seqüències (potser centenars) en una sola mostra, amb les tècniques de seqüenciació massiva es poden estudiar milers de seqüències de centenars de mostres simultàniament. Això, combinat amb les nombroses mostres obtingudes de recents expedicions globals, ha permès analitzar amb molt detall quins grups i espècies dominen i quina és la seva distribució als oceans. Una d’aquestes grans expedicions és la campanya Malaspina (2009-2010) que va mostrejar prop de cent cinquanta estacions als oceans Atlàntic, Índic i Pacífic durant set mesos i mig. La seqüenciació massiva del 18S rDNA de microbis eucariotes de les mostres de superfície i d’uns quants perfils verticals fins a 4.000 m de fondària ha permès, entre altres coses (Giner et al., 2020), identificar els grups principals de flagel·lats heteròtrofs i detectar diferències evidents entre la capa fòtica i l’oceà profund (vegeu la figura 5). En superfície dominen els MAST, que expliquen una tercera part del senyal molecular, seguits pels crisòfits (22 %), bicosoècids (16 %) i picozous (8 %). A l’oceà profund la situació canvia radicalment: la major part del senyal ve dels bicosoècids (63 %) i crisòfits (28 %), mentre que els MAST hi són poc presents (2 %) i la resta de grups de superfície gairebé indetectables. Un cop identificats els grups taxonòmics que majoritàriament formen les comunitats de flagel·lats heteròtrofs, el pas següent és esbrinar quines espècies componen cada grup i determinar l’abundància, distribució, i preferència ecològica de cada una d’elles. Dades preliminars per a dos d’aquests grups, MAST-4 i bicosoècids, mostren que el senyal detectat es pot explicar per unes poques variants de 18S rDNA (que es podria suposar que són espècies). A les mostres de Malaspina el grup MAST-4 està format per vuit espècies i els bicosoècids per cinc espècies, quatre d’elles corresponents a organismes cultivats dels gèneres Cafeteria i Caecitellus. Aquestes tretze espècies estan àmpliament dis-
16
Revista TSCB 70.indd 16
tribuïdes en els tres oceans investigats i sovint tenen tendència a ocupar una regió determinada de la columna d’aigua. A més, presenten alguns patrons de coocurrència i de coexclusió que són prometedors per a entendre la seva adaptació a l’ambient i possibles exclusions mútues per competència. Un cop identificades les espècies més importants de flagel·lats heteròtrofs en el sistema marí, el pas següent és esbrinar quin és el seu paper ecològic. Les xarxes tròfiques microbianes presenten múltiples interaccions, fet que justifica el seu estudi des d’un punt de vista de sistemes complexos per a trobar les espècies que esdevenen nodes centrals i vertebradors
1
145 105 100
140 110
135 115
120
5
130
10
125
95
15
90 85
de l’ecosistema (Bascompte, 2009). De fet, un dels objectius finals és detectar les espècies més importants per al funcionament del sistema, tant com agents de la mortalitat de procariotes com en qualitat de preses per al nivell tròfic superior. Això implica primer saber si totes les espècies són depredadores i després, per a les que ho són, determinar l’espectre de preses, la taxa d’ingestió i la capacitat remineralitzadora. Està clar, doncs, que l’estudi funcional d’aquestes espècies passa sobretot per determinar les seves capacitats tròfiques, un repte de solució poc evident tenint en compte que moltes d’elles no han estat mai cultivades al laboratori. Una manera de fer-ho és combi-
20 25 30
35
40
55 45
50
60
80
65 70
75
Sampling stations World Robinson projection
Figura 5. Localització de les estacions mostrejades durant la campanya global Malaspina on s’ha analitzat la diversitat de flagel·lats heteròtrofs a la superfície (punts vermells) i en perfils verticals (punts grocs). La figura inferior mostra l’abundància relativa mitjana dels grups taxonòmics dominants a la superfície (0 a 200 m) i a l’oceà profund (200 a 4.000 m) (elaboració pròpia). Treballs de la Societat Catalana de Biologia, 70: 12-17
29/3/21 14:58
Petits depredadors marins
nar la tècnica FISH per a les espècies dominants amb experiments de depredació (Massana et al., 2009). Això, junt amb la realització d’incubacions de comunitats naturals, permet esbrinar les taxes de creixement i estudiar els gens expressats mitjançant metatranscriptòmica, la seqüenciació massiva de l’RNA missatger (transcrits) de la comunitat. Tot i que el metatranscriptoma d’una comunitat natural és complicat d’analitzar, es poden tenir resultats clars utilitzant genomes de referència per a pescar els transcrits d’aquesta espècie i obtenir
la seva expressió gènica creixent dins de la comunitat complexa. La genòmica de cèl·lules individuals és una aplicació recent que permet accedir al genoma d’espècies microbianes no cultivades (Mangot et al., 2017). Combina mètodes sofisticats d’aïllament de microbis per citometria de flux o microfluídica i d’amplificació i seqüenciació del DNA a partir de les quantitats minúscules d’una sola cèl·lula. Aquests genomes es poden utilitzar per a estudiar la capacitat funcional d’espècies no cultivades mitjançant genòmica comparada, per a
deduir patrons evolutius entre diferents llinatges i per a pescar els seus transcrits dins d’un metatranscriptoma complex. Finalment, tècniques com el SIP (stable isotope probing) permeten identificar els depredadors d’una presa concreta, mitjançant el marcatge isotòpic de la presa i el seguiment del senyal en la comunitat de depredadors (Orsi et al., 2018). En definitiva, avui dia tenim una completa i variada caixa d’eines per a avançar en el coneixement de la diversitat i funció dels depredadors marins més petits.
Fenchel, T. (1982). «Ecology of heterotrophic microflagellates. IV. Quantitative occurrence and importance as bacterial consumers». Mar. Ecol. Prog. Ser., 9: 35-42. Fernandez, V. I. [et al.] (2019). «A foraging mandala for aquatic microorganisms». ISME J., 13: 563-575. Fuhrman, J. A.; Azam, F. (1980). «Bacterioplankton secondary production estimates for coastal waters of British Columbia, Antarctica, and California». Appl. Environ. Microbiol., 39: 1085-1095. Giner, C. R. [et al.] (2020). «Marked changes in diversity and relative activity of picoeukaryotes with depth in the global ocean». ISME J., 14: 437-449. Haeckel, E. (1904). Kunstformen der Natur. Leipzig; Viena: Bibliographisches Institut. Hobbie, J. E. [et al.] (1977). «Use of nuclepore filters for counting bacteria by fluorescence microscopy». Appl. Environ. Microbiol., 33: 1225-1228. Johnson, C. N. (2002). «Determinants of loss of mammal species during the Late Quaternary ‘megafauna’ extinctions: Life history and ecology, but not body size». Proc. R. Soc. Lond. B., 269: 2221–2227. Jürgens, K.; Massana, R. (2008). «Protistan grazing on marine bacterioplankton». A: Kirchman, D. L. (ed.). Microbial ecology of the oceans. 2a ed. Nova York: John Wiley & Sons, Inc. Mangot, J. F. [et al.] (2017). «Accessing the genomic information of unculturable oceanic picoeukaryotes by combining multiple single cells». Sci. Rep., 7: 41498.
—
Bibliografia Amann, R. I. [et al.] (1995). «Phylogenetic identification and in situ detection of individual microbial cells without cultivation». Microbiol. Rev., 59: 143-169. Azam, F. [et al.] (1983). «The ecological role of water-column microbes in the sea». Mar. Ecol. Prog. Ser., 10: 257-263. Bascompte, J. (2009). «Disentangling the web of life». Science, 325: 416-419. Boulais, J. [et al.] (2010). «Molecular characterization of the evolution of phagosomes». Mol. Syst. Biol., 6: 423. Burns, J. A. [et al.] (2018). «Gene-based predictive models of trophic modes suggest Asgard archaea are not phagocytic». Nature Ecol. Evol., 2: 697-704. Chambouvet, A. [et al.] (2008). «Control of toxic marine dinoflagellate blooms by serial parasitic killers». Science, 322: 1254-1257. Dawkins, R.; Krebs, J. (1979). «Arms races between and within species». Proc. R. Soc. Lond. B., 205: 489-511. DeLong, E. F. (2009). «The microbial ocean from genomes to biomes». Nature, 459: 200-206. Eccleston-Parry, J.; Leadbeater, B. (1994). «A comparison of the growth kinetics of six marine heterotrophic nanoflagellates fed with one bacterial species». Mar. Ecol. Prog. Ser., 105: 167-177. Falkowski, P. [et al.] (2008). «The microbial engines that drive Earth’s biogeochemical cycles». Science, 320: 1034-1039.
Treballs de la Societat Catalana de Biologia, 70: 12-17
Revista TSCB 70.indd 17
(2018). «Constant abundances of ubiquitous uncultured protists in the open sea assessed by automated microscopy». Environ. Microbiol., 20: 3876-3889. Martin, W. F. [et al.] (2017). «The physiology of phagocytosis in the context of mitochondrial origin». Microb. Molec. Biol. Rev., 81: e00008-17. Massana, R. [et al.] (2006). «Distribution and abundance of uncultured heterotrophic flagellates in the world oceans». Environ. Microbiol., 8: 1515-1522. — (2009). «Grazing rates and functional diversity of uncultured heterotrophic flagellates». ISME J., 3: 588-596. Moon-van der Staay, S. Y. [et al.] (2001). «Oceanic 18S rDNA sequences from picoplankton reveal unsuspected eukaryotic diversity». Nature, 409: 607-610. Orsi, W. D. [et al.] (2018). «Identifying protist consumers of photosynthetic picoeukaryotes in the surface ocean using stable isotope probing». Environ. Microbiol. 20: 815-827. Parfrey, L. W. [et al.] (2011). «Estimating the timing of early eukaryotic diversification with multigene molecular clocks». Proc. Natl. Acad. Sci. USA, 108: 13624-13629. Peretó, J. (2014). «La vida impura. Algunes visions sobre la vida que ens ha llegat Lynn Margulis». Treb. Soc. Cat. Biol., 65: 56-59. Pernthaler, J. (2005). «Predation on prokaryotes in the water column and its ecological implications». Nature Rev. Microbiol., 3: 537-546.
17
29/3/21 14:58
Colors d’aigua, colors d’algues Elisa Berdalet
DOI: 10.2436/20.1501.02.187 ISSN (ed. impresa): 0212-3037
Institut de Ciències del Mar (ICM-CSIC)
ISSN (ed. digital): 2013-9802
Correspondència: Elisa Berdalet. Institut de Ciències del Mar (ICM-CSIC). Passeig Marítim de la Barceloneta, 37-49. 08003 Barcelona. Adreça electrònica: berdalet@icm.csic.es.
http://revistes.iec.cat/index.php/TSCB Rebut: 05/06/2019 Acceptat: 25/01/2020
Resum
Colours of water, colours of algae
Els organismes fotosintètics capten l’energia de la llum gràcies a una gran diversitat de pigments els quals, alhora, són reflex de la història evolutiva a partir d’endosimbiosis i mutacions successives. Els pigments són també una eina de classificació taxonòmica. En aquest document es presenten breument els grups principals d’organismes fotosintètics microscòpics, microalgues i cianobacteris que trobem en els hàbitats aquàtics, indicant en particular els pigments que els caracteritzen. Aquests organismes constitueixen la base de les xarxes tròfiques microbianes i són fonamentals per a la vida al planeta. Tanmateix, en alguns casos concrets, les proliferacions de certs organismes comporten efectes negatius a les persones i el medi ambient. Es tracta de les proliferacions algals nocives o harmful algal blooms (HAB), les quals sovint es fan visibles perquè l’aigua pren el color dels pigments fotosintètics, el color de l’alga.
Summary
Paraules clau: pigments fotosintètics, proliferacions algals nocives.
A great diversity of pigments allow photosynthetic organisms to capture light energy to conduct photosynthesis. Pigments are a fingerprint of the evolutionary history of these organisms through successive endosymbioses and mutations, as well as a taxonomic classification tool. In this paper, the main groups of microscopic photosynthetic organisms found in aquatic habitats – microalgae and cyanobacteria – are briefly presented, with a specific mention of their pigment composition. These organisms form the basis of microbial food webs and they are fundamental for life on our planet. In some specific cases, however, the proliferation of certain organisms has negative effects on humans and the environment. These events are referred to as “harmful algal blooms” (HABs), which are often visible because the water takes on the colour of the photosynthetic pigments – the colour of the algae.
Keywords: photosynthetic pigments, harmful algal blooms, HABs.
1. Introducció Vivim a la vora de la Mediterrània, i tenim com a icona les cales d’un blau intens de la Costa Brava. El color blau de l’aigua, sigui de mars, rius o llacs, ve determinat pel fet que el blau és el color que és menys absorbit per les molècules d’aigua. Però l’aigua és l’hàbitat d’una gran diversitat d’organismes fotosintètics dotats de diferents pigments que poden donar també el seu color a l’aigua. Els pigments permeten captar l’energia solar i realitzar la fotosíntesi, que consisteix en la fixació del carboni inorgànic (CO2) i la síntesi de matèria orgànica (glucosa). En gran part gràcies a aquests organismes s’estructuren les xarxes tròfiques en els ecosistemes i l’espècie humana habita avui el planeta Terra. Els organismes fotosintètics poden ser pluricel·lulars i macroscòpics (macroalgues i macròfits) o unicel·lulars i microscòpics (microalgues i certs bacteris). El pigment fotosintètic per excel·lència és la clorofil·la, comuna a tots ells, tant terrestres com aquàtics, i confereix el color verd a les cèl·lules. Tanmateix, tots coneixem la gran varietat de colors de les flors i fruits dels vegetals terrestres i fins i tot de la fusta, coloracions que venen determinades per pigments diversos. En el món aquàtic una gran diversitat de pigments acompanyants de la
18
Revista TSCB 70.indd 18
clorofil·la permet a les cèl·lules de captar l’energia solar que els arriba a través de l’aigua i a diferents fondàries, i realitzar així la fotosíntesi. Els avenços tecnològics han revelat la diversitat de pigments fotosintètics de les algues, microalgues i cianobacteris aquàtics, els quals constitueixen un caràcter taxonòmic i són un marcador més de l’evolució d’aquests organismes en el planeta. Al medi aquàtic, la gran majoria d’organismes fotosintètics són microscòpics i els anomenem genèricament microalgues, si bé també hi ha bacteris que realitzen la fotosíntesi. Aquest treball se centra en les microalgues en aquest sentit ampli, incloent-hi els cianobacteris. Les microalgues, degut a la seva petita mida, són arrossegades pels corrents marins tot i que poden nedar mitjançant flagells o regular la seva flotació per mitjà de vacúols. Si el seu cicle de vida s’esdevé principalment surant a la massa d’aigua, les anomenem fitoplàncton. En canvi, si les trobem preferentment adherides a un substrat del fons marí (roques, sorra, macroalgues, coralls…) les anomenem fitobentos. Quan les microalgues es troben en petites quantitats, l’aigua manté el seu color blau o fins i tot transparent si la posem en un got. Tanmateix, quan les microalgues d’una mateixa espècie
(o de grups taxonòmics que contenen pigments d’un color similar) proliferen en grans quantitats, l’aigua podrà arribar a prendre la coloració de les algues: és per això que, en certes ocasions, el color de l’aigua esdevé el color de les algues.
2. Diversitat de microalgues Les microalgues van anar evolucionant a partir d’un primer cianobacteri (procariota) ancestral amb capacitat de realitzar la fotosíntesi amb producció d’oxigen (Delwiche, 1999) el qual va ser ingerit per un protist (amb nucli definit) no fotosintètic, fagòtrof que no el va digerir sinó que el va incorporar en el seu interior i el va mantenir de manera simbiòtica. D’aquesta manera, per endosimbiosi va sorgir el primer eucariota fotosintètic i el cianobacteri va esdevenir el primer plàstid o cloroplast. Dit d’una altra manera, els cloroplasts serien orgànuls endosimbionts. Al llarg de milions d’anys d’evolució, el genoma del plàstid s’aniria reduint (per transferència, pèrdua o substitució de gens) de manera que les proteïnes del plast serien codificades pel genoma nuclear de l’hoste. Successius processos d’endosimbiosis i mutacions van anar originant els diferent llinatges de microalgues fotosintètiques, vegetals superiors i terrestres.
Treballs de la Societat Catalana de Biologia, 70: 18-26
29/3/21 14:58
Colors d’aigua, colors d’algues
Paral·lelament a aquestes simbiosis es produeix l’evolució dels diferents pigments els quals, en l’actualitat, constitueixen un ampli ventall de compostos que possibiliten l’absorció de totes les longituds d’ona de la llum que arriba als hàbitats aquàtics i a diferents fondàries (Jeffrey i Wright, 2006). Avui, aquesta evolució és tangible en el cas de la dinoflagel· lada heteròtrofa Dinophysis la qual, pel procés de cleptoplastídia incorpora els cloroplasts de la seva presa, un ciliat el qual, alhora, els hauria retingut de la seva presa, una microalga (per exemple Mesodinium rubrum i Teleaulax, respectivament, segons Park et al., 2006). Aquest sistema explicaria la diversitat de les estratègies d’alimentació de les dinoflagel·lades (secció 2.5). En la història més recent del nostre planeta, les microalgues marines representen aproximadament un terç de la vegetació total aquàtica, constitueixen la base de les xarxes tròfiques que suporten directament o indirectament els animals marins, algunes d’elles participen activament en processos climàtics aportant nuclis de condensació de núvols (vegeu la secció 2.8) i, globalment, han anat absorbint gairebé una tercera part del carboni antropogènic de l’atmosfera (Sabine i Feely, 2007). Per aquests motius, la fisiologia i l’ecologia de les microalgues han estat objecte d’estudis intensos i s’han esmerçat grans esforços en la seva caracterització taxonòmica, en el seu mostreig específic i també en la seva detecció a gran escala mitjançant tècniques diverses incloent-hi els satèl·lits, els quals es basen justament en la detecció dels pigments fotosintètics i, en concret, de la clorofil·la a comuna a totes les microalgues. Les microalgues i els cianobacteris es troben en un espectre de mida que aniria d’1 a 200 µm, aproximadament. La mida és una característica taxonòmica i també està vinculada a la funció que poden realitzar les microalgues dins les xarxes tròfiques microbianes. Concretament parlem de microplàncton, nanoplàncton o picoplàncton referint-nos a les fraccions que van de 200 a 20 µm, de 20 a 2 µm i inferiors a 2 µm, respectivament, i entre les quals s’estableixen relacions tròfiques amb d’altres organismes planctònics. Notem que, tot i que la terminologia inclou el sufix -plàncton, els mateixos termes poden usar-se si parlem de comunitats bentòniques. La funció en la xarxa tròfica dependrà de la capacitat de fixar carboni, és a dir, de ser fotosintètic o no, i de la possibilitat d’ingerir o ser ingerit per d’altres organismes.
A continuació es presenten breument les característiques essencials d’onze dels vint-icinc grups taxonòmics principals de microalgues, els quals s’han establert a partir de combinacions de dades de morfologia, genètica, pigments, i en alguns casos, toxines. Els grups que es presenten aquí han estat seleccionats per la seva abundància, la seva implicació en processos rellevants en el planeta i, en alguns casos, en fenòmens amb efectes negatius per a les persones o els ecosistemes (vegeu la secció 4). Les microalgues són majoritàriament eucariotes (amb el DNA dins d’un nucli diferenciat), excepte els cianobacteris, que són procariotes. Aquests no tenen membranes ni orgànuls diferenciats i el DNA no està inclòs dins d’una membrana nuclear. En la classificació dels grups de microalgues hi tenen un paper molt important els pigments, els quals tenen un caràcter taxonòmic. La classificació que es proposa en aquest document no pretén ser ortodoxa. S’ha basat en la presentada per Jeffrey et al. (2011). De fet, com aquests autors indiquen, els avenços actuals en genòmica, observació microscòpica i cultius en el laboratori estan comportant reconstruccions filogenètiques i, per tant, canvis substancials en la taxonomia clàssica. La terminologia taxonòmica emprada a continuació segueix la base de dades d’accés obert AlgaeBase (http://www.algaebase.org). Es poden trobar imatges de les espècies de microalgues a AlgaeBase i a guies d’identificació com ara Thomas (1997).
—— Clorofil·les: Chl a, Chl b, Mg-DVP (èster monometílic de la magnesi-2,4-divinilfeoporpfirina a5). —— Carotenoides: zeaxantina, ß-ß-carotè, criptoxantina. —— Ficobiliproteïnes: absents. —— Prochlorococcus: Cèl·lules coccoides o el·lipsoides de 0,6-0,8 µm de diàmetre i fins a 1,6 µm de llarg. Són comunes a les comunitats de picoplàncton marines tropicals i subtropicals, i de fet, podria ser l’organisme fotosintètic més abundant als mars. Tenen la paret cel· lular recoberta per una protecció gruixuda. Contenen: —— Clorofil·les: DV-Chl a, DV-Chl b, Mg-DVP. —— Carotenoides: zeaxantina, ß-ε-carotè. —— Ficobiliproteïnes: traces de ficoeritrina. —— Acaryochloris: Cèl·lules coccoides o el· lipsoides de 1-1,5 µm de diàmetre i fins a 1,5-3,0 µm de llarg. Viuen lliures en hàbitats endolítics i epifítics, simbiòtics en ascídies. Les parets cel·lulars es troben envoltades per mucílags. Contenen: —— Clorofil·les: Chl d, traces de Chl a i Mg-DVP. —— Carotenoides: zeaxantina, ß-ε-carotè. —— Ficobiliproteïnes: traces de ficocianina i al·loficocianina.
2.1. Procloròfits Color: Verd pàl·lid. Espècies representatives: Prochlorococcus (vegeu la figura 1). Distribució: Es troben en mars temperats i tropicals, en capes superficials de la columna d’aigua, on reben radiació infraroja, la qual és captada per la clorofil·la d. Anatomia, morfologia i organització cel·lular: Són un grup monofilètic dins els cianobacteris. No tenen flagells. Van ser descoberts en la darrera dècada del segle xx (Chisholm et al., 1988; Goericke i Repeta, 1992). Pigments: Combinacions molt concretes de pigments s’associen als quatre grups de procloròfits: —— Prochloron (cèl·lules de 10-25 µm de diàmetre, que viuen com a simbionts d’invertebrats marins) i Prochlorothrix (fan filaments –tricomes–, de 0,5-1 µm d’ample per 3-10 µm de llarg, i es troben només en aigua dolça). Contenen:
2.2. Cianobacteris o, antigament, algues blaves Color: Blau-verd, gris-verd o vermellós, segons les ficobiliproteïnes presents. Espècies representatives: Synechococcus, Trichodesmium, Oscillatoria, Nostoc, Dolichospermum (abans Anabaena, vegeu la figura 1), Microcystis (vegeu la figura 2). Distribució: Es troben a la majoria d’hàbitats aquàtics temperats i tropicals, marins i d’aigua dolça. Formen part del picoplàncton, sobretot en ambients tropicals i subtropicals. Algunes espècies d’aigua dolça produeixen toxines (saxitoxines, microcistines, nodularina) que causen intoxicacions en humans i fauna domèstica i salvatge per ingestió de l’aigua o simple contacte cutani, com s’explica a la secció 4. Anatomia, morfologia, organització general: Aquest grup inclou organismes procariotes, i per això en diem cianobacteris, si bé en el passat havien estat anomenats també algues
Treballs de la Societat Catalana de Biologia, 70: 18-26
Revista TSCB 70.indd 19
19
29/3/21 14:58
Elisa Berdalet
A
E
H
10 µm
0,2 µm
I
B 20 µm
F 10 µm
5 µm
10 µm
C
J
100 µm
G
K
20 µm
D
20 µm
50 µm
1 µm
Figura 1. Imatges microscòpiques d’espècies representatives dels grups descrits. Totes les fotografies estan reproduïdes amb permís dels autors o han estat obtingudes de webs obertes. A. Procloròfita, Prochlorococcus, micrografia amb microscòpia electrònica de transmissió. Fotografia: Rippka et al., 2000. B. Dunaliella tertiolecta. Font: Phycokey, cfb.unh.edu. C. Rafidòfita, Chattonella sp. Font: Phycockey, cfn.unh.edu. D. Diatomea cèntrica, Chaetoceros afinis. Gentilesa de la doctora Laura Arin, ICM-CSIC. E. Filament de Dolichospermum (= Anabaena), cianobacteri d’aigua dolça. Gentilesa de la doctora Michele Burford, Universitat Griffith (Austràlia). F. Diatomea cilíndrica, Coscinodiscus sp., no tòxica. Font: nordicmicroalgae.org. G. Colònies de Phaeocystis sp. Fotografia d’Arin et al., 2014. H. Dictiochofícia, Pseudochattonella verruculosa. Fotografia de la Col·lecció de Cultius del Centre Nacional d’Algues Marines i Microbiota al Laboratori Bigelow, EUA. I. Dinoflagel·lada tòxica, Alexandrium tamarense, productora de PSP. Fotografia: doctor Jorge Mardones, Centro de Estudios de Algas Nocivas, Puerto Montt (Xile). J. Pelagofita, Pelagococcus sp. Fotografia de la Col·lecció de Cultius del Centre Nacional d’Algues Marines i Microbiota al Laboratori Bigelow, EUA. K. Coccolitoforal, Emiliania huxleyi. Fotografia: doctora L. Cros, ICM-CSIC.
blaves. Poden ser unicel·lulars coccoïdals (1-2 µm), formar filaments de fins a 2 mm de llargària o formar colònies. Com a procariotes, no tenen cloroplasts estructurats, de manera que els tilacoides es troben lliures al citoplasma, i s’hi adhereixen els ficobilisomes, que contenen d’altres pigments, les ficobiliproteïnes. La paret cel·lular està constituïda per una capa rígida del peptidoglicà mureïna envoltada
20
Revista TSCB 70.indd 20
lamentosos i presents en hàbitats marins o d’aigua dolça. Contenen: —— Clorofil·les: Chl a, traces de Mg-DVP. —— Carotenoides: zeaxantina, ß-ß-carotè, mixoxantofil·la. —— D’altres carotenoides: equinenona, cantaxantina. —— Grup 2: inclou majoritàriament el gènere Synechococcus, unicel·lulars marins; són un component molt important del picoplàncton. Contenen: —— Clorofil·les: Chl a, traces de Mg-DVP. —— Carotenoides: zeaxantina, ß-ß-carotè. —— Ficobiliproteïnes: ficoeritrina, ficocianina, al·loficocianina.
per una doble membrana i una capa protectora mucilaginosa. Algunes espècies (Trichodesmium) tenen vacúols per a controlar la flotació, d’altres poden fixar el nitrogen atmosfèric en cèl·lules especialitzades (heterocists) on no hi pot entrar l’oxigen. No tenen flagells. Pigments: Hi ha dos grups de cianobacteris segons els seus pigments: —— Grup 1: Inclou els gèneres Trichodesmium, Oscillatoria, Nostoc, tots ells fi-
2.3. Rodòfits Color: Vermell intens degut, principalment, a la presència de ficoeritrina; però alguns poden tenir un color blau-verd per contenir també ficocianines. Espècies representatives: Gracillaria, Rhodella, Cyanidium, Porphyridium. Distribució: Es troben al mar, als estuaris, als rius i al sòl. Les algues roges constitueixen un grup ancestral d’eucariotes que van donar origen a d’altres algues unicel·lulars o pluricel·lulars amb pigmentació vermella. Actualment, la majoria són pluricel·lulars macroscòpiques (per exemple, el gènere Gracillaria), especialment diversificades al sud d’Austràlia i només uns pocs gèneres són unicel·lulars, com ara Porphyridium, Rhodella o Cyanidium. Anatomia, morfologia i organització cel·lular: Els rodòfits unicel·lulars són arrodonits, coccoïdals, de 5-15 µm de diàmetre i no tenen flagells. Poden formar colònies integrats dins una matriu de polisacàrids. De fet, algunes microalgues tenen interès biotecnològic. Són cultivades en massa per a l’obtenció de mucopolisacàrids (xilà, agar, carragenat) i substàncies d’aplicació farmacèutica. Pigments: Contenen: —— Clorofil·les: Chl a. —— Carotenoides: zeaxantina, ß-ß-carotè. —— Ficobiliproteïnes: ficoeritrina principalment, i en menor quantitat ficocianina i al·loficocianina. 2.4. Diatomees (bacil·lariòfits) Color: Daurat, ataronjat, marronós. Espècies representatives: Són, probablement, un dels grups de microalgues més ben
Treballs de la Societat Catalana de Biologia, 70: 18-26
29/3/21 14:58
Colors d’aigua, colors d’algues
A
C
B
D
F
G
E
Figura 2. Exemples de HAB. Totes les fotografies estan reproduïdes amb permís dels autors. A. Karenia brevis produeix proliferacions massives i recurrents a la costa de Florida i el golf de Mèxic, on causa mortaldats de mamífers marins, irritacions respiratòries i intoxicacions alimentàries. Fotografia: Charlotte Harbor, Charlotte Sun Herald, Paul Schmidt. B. Proliferació del cianobacteri Microcystis aeruginosa a Califòrnia (EUA), causant d’irritacions respiratòries i cutànies, i microcistines, toxines que contaminen l’aigua de beure. Fotografia: doctora Lorraine C. Backer, CDC, Atlanta (EUA). C i D. Proliferacions de la dinoflagel·lada bentònica Ostreopsis cf. ovata a la costa mediterrània, implicades en mortaldats de macrofauna bentònica i irritacions respiratòries en humans. Agregats a la superfície (C) i recobrint les macroalgues del fons (D). Fotografies: doctora E. Berdalet i doctora M. Vila, ICM-CSIC. E. Mortaldat de peixos causada per la dinoflagel·lada ictiotòxica Karlodinium australe. Fotografia: doctor Po Teen Lim, Universitat de Malàisia (Malàisia). F. Imatge de satèl·lit d’una proliferació no tòxica de la coccolitoforal Emiliania. Fotografia: doctor Robin Raine, Institut Marí, Galway (Irlanda). G. Proliferació de cianobacteris en el mar Bàltic, el 27 de juliol de 2008, que afecten sobretot la disponibilitat d’oxigen quan la proliferació decau. Fotografia de la Guàrdia Costanera de Suècia.
caracteritzats, gràcies a la seva paret cel·lular, frústul, de sílice, la qual cosa n’ha facilitat la classificació taxonòmica. Actualment hi ha més de deu mil tàxons ben definits segons la morfologia externa, si bé l’anàlisi dels genomes n’està permetent una revisió més exhaustiva. Per això és difícil donar alguns exemples, n’hi ha molts! Alguns dels més coneguts són Chaetoceros, Thalassiosira, Diploneis, Bacteriastrum, Coscinodiscus, Pseudo-nitzschia (vegeu la figura 1), components del microplàncton. Cal destacar la descoberta en els darrers anys de diatomees picoplanctòniques, com el Minidiscus i d’altres grups filogenèticament molt propers a les diatomees (quant a pigments i d’altres característiques) com les Bolidofícies (aïllades al Pacífic tropical i el Mediterrani, i presents a l’Àrtic) i les Parmals. Distribució: Habiten aigües dolces i marines, i són presents en tots els oceans incloent-hi el
gel marí. Són el grup responsable de les proliferacions primaverals en aigües temperades després de la mescla hivernal, amb disponibilitat de nutrients en superfície i nivells adequats de llum. Algunes diatomees tropicals contenen cianobacteris simbionts que fixen el nitrogen en aigües oligòtrofes. D’altres diatomees són endosimbionts de dinoflagel·lades i foraminífers. Només hi ha un gènere tòxic, Pseudo-nitzschia, relacionat amb la síndrome amnèsica (vegeu la secció 4, taula 1). En alguns casos, s’han relacionat proliferacions molt denses de diatomees amb mortalitat de peixos degut al dany causat a les brànquies per la sílice de les valves. Anatomia, morfologia i organització cel·lular: Majoritàriament són unicel·lulars si bé poden formar cadenes d’individus. Cobreixen un ampli rang de mides, des de 2 fins a 200 µm per cèl·lula. El frústul de sílice consisTreballs de la Societat Catalana de Biologia, 70: 18-26
Revista TSCB 70.indd 21
teix en dues parts, teques, una més petita que l’altra, i que encaixen a mode de capsa. La morfologia de les cèl·lules pot ser radial o bilateral, la qual cosa determina dos grans grups, diatomees cèntriques o pennades, respectivament, amb ornamentacions molt específiques. El frústul es forma per la deposició de sílice a partir d’unes vesícules situades a l’interior de la cèl·lula. La duplicació cel·lular implica que cada cèl·lula filla hereta una de les teques i en sintetitza una de nova, sempre la de menor dimensió. Això comporta arribar a una mida límit a partir de la qual les cèl·lules es comporten com a gàmetes que es fusionen i formen un zigot per tal de recuperar la mida màxima de l’espècie. No presenten flagells excepte alguns gàmetes mascles. Pigments: Contenen: —— Clorofil·les: Chl a, diferents derivats de la Chl c (c1, c2 i c3), Mg-DVP. —— Carotenoides: els més comuns són fucoxantina, diadinoxantina, diatoxantina, ß-ß-carotè i 19’-butanoiloxifucoxantina; en menor quantitat, depenent de condicions d’alta irradiància poden sintetitzar pigments específics com la violaxantina, la anteraxantina o la zeaxantina.
2.5. Dinoflagel·lades (dinofícies) Constitueixen un grup molt divers i complex de flagel·lades unicel·lulars amb fins a cent trenta gèneres i mil dues-centes espècies vivents, i moltes espècies fòssils conegudes. La meitat de les espècies serien autòtrofes tot i que cada vegada se’n descobreixen més amb capacitat nutricional heteròtrofa (ingereixen preses i no fan fotosíntesi) o mixòtrofa (utilitzen la nutrició fotosintètica o heteròtrofa segons la disponibilitat de nutrients i llum). També n’hi ha que contenen endosimbionts, i d’altres que són endosimbionts de coralls, bivalves, radiolaris, acantaris, foraminífers. Color: Marró-vermellós (degut a la peridinina), poden prendre també el color de la microalga endosimbiont que tinguin al seu interior (haptòfit, diatomea, criptòfit, prasinòfit). Espècies representatives: Com en el cas de les diatomees, es fa difícil d’assenyalar-ne de «representatives». Peridinium, Protogonyaulax, Ceratium, Oxyrrhis, Gambierdiscus, Alexandrium, Prorocentrum, Karenia (vegeu les figures 1 i 2). Distribució: Àmpliament distribuïdes en aigua dolça i en mars tropicals, subtropicals, temperats i polars. Es caracteritzen per produir proliferacions especialment a zones cos-
21
29/3/21 14:58
Elisa Berdalet
taneres, on causen impactes negatius en les persones i el medi ambient (vegeu la secció 4). El seu cicle de vida és complex i inclou cèl·lules vegetatives i cists de resistència que n’afavoreixen la dispersió i la supervivència en moments poc favorables, la qual cosa contribueix a la recurrència de les proliferacions. La gran majoria són planctòniques, i n’hi ha de bentòniques, fins i tot que viuen entre els grans de sorra en zones costaneres. Anatomia, morfologia i organització cel·lular: Són unicel·lulars, de 5 a 2.000 µm. La cèl·lula està recorreguda per un solc transversal que la divideix en una zona superior (epiteca) i una d’inferior (hipoteca). Els dos flagells surten d’un porus en el solc. Un d’ells es troba ondulat, com un cinturó al llarg del solc, i proporciona el moviment de rotació sobre sí mateix. L’altre flagell seria el tractor. Es caracteritzen per tenir un contingut molt elevat de DNA, amb poliploïdies. La mitosi és peculiar, i és anomenada dinomitosi. No tenen histones típiques, els cromosomes no es relaxen durant la interfase, la membrana nuclear no es dissol, i un sistema complex de microtúbuls que travessen el nucli separa les cromàtides filles amb l’ajuda dels centrosomes. Algunes cèl·lules produeixen tricocists, que excreten substàncies mucoses per adherir-se a d’altres cèl·lules de dinoflagel·lades o a preses per ingerir-les, o per adherir-se al substrat en el cas de les espècies bentòniques. D’altres sintetitzen biotoxines que poden afectar els humans, mamífers i aus marines, o el mateix ecosistema. Són el principal grup amb espècies productores de toxines i proliferacions algals nocives (vegeu la secció 4). Pigments: Contenen: —— Clorofil·les: Chl a i c2, Mg-DVP. —— Carotenoides: peridinina, diadinoxantina, diatoxantina, dinoxantina, peridinol, pirroxantina, ß-carotè. —— Pigments dels simbionts que tinguin en el seu interior.
2.6. Dictiocofícies Color: Daurat. Espècies representatives: Pseudochattonella farcimen (vegeu la figura 1), Florenciella parvula. Distribució: Són presents en aigües dolces i marines, preferentment en latituds temperades i polars, a temperatures inferiors als 15 oC. El gènere Pseudochattonella ha estat implicat en morts de peixos, sobretot en zones d’aqüicultura. Anatomia, morfologia i organització cel·lular: Són organismes unicel·lulars i estan
22
Revista TSCB 70.indd 22
coberts per estructures silíciques tubulars a mode de xarxa. Pigments: Contenen: —— Clorofil·les: Chl a, diferents derivats de la Chl c (c1, c2 i c3). —— Carotenoides: els més comuns són fucoxantina, diadinoxantina, diatoxantina, ß-ß-carotè i 19’-butanoiloxifucoxantina, i d’altres pigments no identificats però molt específics.
2.7. Pelagofícies Color: Verd pàl·lid (Pelagococcus subviridis) o marró daurat (Pelagomonas, Aureococcus). Espècies representatives: Pelagococcus subviridis (vegeu la figura 1), Pelagomonas, Aureococcus, Aureoumbra. Distribució: Són abundants en el pico- i nanoplàncton oceànic i alguns gèneres s’han vist implicats en proliferacions nocives (marees marrons, brown tides) en estuaris. Anatomia, morfologia i organització cel·lular: Són coccoides unicel·lulars, amb flagells, petites (1,5-5 µm de diàmetre) i algunes fan colònies filamentoses o palmel·loides. Algunes espècies tenen les cèl·lules recobertes per una paret relativament gruixuda. Pigments: Contenen: —— Clorofil·les: Chl a i c2 sempre presents; Chl c1 i c3, variables. —— Carotenoides: els més comuns són fucoxantina, diadinoxantina, diatoxantina, ß-ß-carotè i 19’-butanoiloxifucoxantina, i d’altres pigments ε-ε-carotè i giroxantina de manera variable. 2.8. Rafidofícies Aquest grup, relacionat amb els de les crisofícies, eustigmatofícies, feofícies i xantofícies, és objecte junt amb ells de reorganitzacions taxonòmiques importants en els darrers anys, sobretot degut a la caracterització de la seva ultraestructura cel·lular i del genoma. Color: Daurat, marró-daurat en les espècies marines; verd brillant en les d’aigua dolça. Espècies representatives: Chattonella antiqua, Fibrocapsa japonica, Olisthodiscus luteus, Heterosigma akashiwo (vegeu la figura 1). Distribució: Predominen en aigües dolces particularment àcides, però també en regions costaneres marines on s’han relacionat amb proliferacions nocives causants de mortaldats massives de peixos (vegeu la secció 4). Anatomia, morfologia i organització cel·lular: Són unicel·lulars, coccoides o ovoides, sense paret cel·lular (cèl·lules «nues») sovint aplanades dorsoventralment, relativament
grans (30-100 µm) i amb dos flagells. Destaca la producció de mucocists, orgànuls productors de mucopolisacàrids que es disparen contra les cèl·lules del peixos (normalment les gal· les, on s’hi adhereixen) als que provoquen la mort per mecanismes encara no ben determinats (dany mecànic, acumulació de mucopolisacàrid que comporta obstrucció de la respiració, producció d’ictiotoxines). Algunes espècies produeixen cists de resistència que romanen als sediments durant mesos abans de tornar a germinar. Pigments: Contenen: —— Clorofil·les: Chl a, c1 i c2 (tot i que la c2 pot ser absent). —— Carotenoides: els més comuns són fucoxantina, violaxantina, zeaxantina, ß-ß-carotè, 19’-butanoiloxifucoxantina (en una espècie que viu a la sorra).
2.9. Haptòfits Els haptòfits constituïen un grup de microalgues unicel·lulars, preferentment marines; la majoria són flagel·lats fotosintètics, amb clorofil·les a i c. Una característica particular és la presència d’un haptonema filamentós situat entre ambdós flagells, el qual pot ser molt llarg i cargolat o bé format per microtúbuls curts i flexibles. Des de finals del segle xx, aquest grup està sent objecte d’una important reconsideració taxonòmica, sobre la base de la utilització del DNA ribosòmic 18S. Això ha comportat la divisió dels haptòfits en dos grups: les pavlovofícies i les primnesiofícies (o coccolitoforals). Ambdós grups serien algues de color marró daurat (golden brown). Les pavlovofícies (per exemple, Pavlova, Diacronema) serien probablement un grup més primitiu que es troba en ambients aquàtics molt diversos, i tenen pigments molt similars als de les primnesiofícies. Per la seva importància en processos diversos a escala planetària, es presenten amb més detall les primnesofícies (o coccolitoforals). Color: Marró daurat. Espècies representatives: Isochrysis galbana, Emiliania huxleyi, Phaeocystis (vegeu les figures 1 i 2). Distribució: Constitueixen un grup molt important del nanoplàncton, abundant en oceans tropicals i subtropicals, i fins i tot estan presents a latituds polars (Phaeocystis). Algunes espècies produeixen proliferacions extenses com ara Emiliania huxleyi i Phaeocystis. Ambdós produeixen bioaerosols que contenen sofre (particularment el dimetilsulfòxid o sulfòxid de dimetil, DMS), els quals contribueixen notablement a la formació de nuclis de con-
Treballs de la Societat Catalana de Biologia, 70: 18-26
29/3/21 14:58
Colors d’aigua, colors d’algues
Com s’ha esmentat en la introducció d’aquest document, els organismes fotosintètics fixen el carboni, produeixen oxigen i constitueixen les bases de les xarxes alimentàries dels eco-
100 anys
Afloraments, fronts, filaments, remolins
10 anys
1 setm
1s
Cicles de biomassa i de la capa superficial de barreja Precipitació, aports de rius, ressuspensió de sediments
Migració del plàncton
1 dia
1 min
ENSO
Proliferacions de fitoplàncton i depredació per zooplàncton
1 mes
1h
Ones inercials / internes i solitàries
Moviment Turbulència individual petita escala
Marees internes
Marees superficials
Ones superficials
Processos moleculars
m
km 0 00 10 m k 00 10 km 0 10 km 10 km
1
0
m
m
10
1
dm
10
1
cm m
m
Escales espacials horitzontals
Figura 3. En els ecosistemes aquàtics, la dinàmica del fitoplàncton ve determinada per molts factors biològics, físics, químics i fins i tot geològics que interaccionen en diverses escales espaciotemporals. Adaptada de Dickey, 2001.
Treballs de la Societat Catalana de Biologia, 70: 18-26
Revista TSCB 70.indd 23
Oscil·lacions Clima decadals
Fenòmens de mesoscala
1 any
1
2.11. Cloròfits o algues verdes Els cloròfits són un grup morfològicament molt divers d’eucariotes fotosintètics que tenen els cloroplasts embolcallats per una doble membrana, tilacoides apilats, Chl a i b, i alguns carotenoides únics. Al llarg de l’evolució van ser
sistemes aquàtics. En els ecosistemes aquàtics, la dinàmica del fitoplàncton ve determinada per molts factors biològics, físics, químics i fins i tot geològics que interaccionen a diverses escales espaciotemporals. Aquesta idea és difícil d’explicar breument, però va ser conceptualitzada en els esquemes de Dickey (2001) (vegeu la figura 3), adaptada alhora de l’esquema d’Stommel (1963) sobre les diferents escales dels processos físics que s’esdevenen a diferents escales en el mar i que cal mostrejar per tant amb sistemes apropiats per a copsar aquestes diferents escales. Entre els factors físics, la turbulència és clau per a explicar la dinàmica dels ecosistemes aquàtics. Així mateix ho va incorporar Margalef (1978) en la seva mandala, el model conceptual que descriu la successió del fitoplàncton en els sistemes costaners i a latituds temperades principalment: la turbulència o energia externa determina la disponibilitat de llum i nutrients per a les cèl·lules fotosintètiques, la seva posició en la columna d’aigua, el confinament o la dispersió dels organismes que es reprodueixen, interaccionen entre ells i amb els seus depredadors o paràsits, l’inici, el manteniment i la finalització de les proliferacions de fitoplàncton i per tant, de l’ecosistema en general.
3. Una pinzellada a l’ecologia de les microalgues
1
2.10. Criptòfits Són un grup ben definit per la presència del pigment acompanyant carotenoide, l’al·loxantina. Són nanoflagel·lats majoritàriament fotosintètics. Color: Vermell o blau-verd, segons domini la ficoeritrina o la ficocianina. Espècies representatives: Cryptomonas, Rhodomonas, Chroomonas, Teleaulax (aquests últims poden ser simbionts de ciliats com ara de la Myrionecta rubra, i donar una coloració vermella a l’aigua quan prolifera el ciliat, el qual no té pigmentació). Distribució: Són ubics a tots els medis aquàtics, a la neu i el sòl. Anatomia, morfologia i organització cel·lular: Són ovoides unicel·lulars sovint aplanats, de 6-20 µm, poden tenir la cèl·lula coberta per escates rígides proteiques. Pigments: Contenen: —— Clorofil·les: Chl a i c2, Mg-DVP. —— Carotenoides: al·loxantina, crocoxantina, monadoxantina, ß-ε-carotè. —— Ficobiliproteïnes.
substituïts per les rodòfites en el medi marí i van passar a dominar l’hàbitat terrestre. Inclouen diversos grups dins les clorofícies: prasinòfits, cloròfits, trebouxofícies, ulvofícies, stretptòfils. Aquí es presenten els cloròfits. Color: Verd oliva o d’herba clàssic. Espècies representatives: Dunaliella tertiolecta (verda, vegeu la figura 1), Chlorella, Micromonas; en el cas de Dunaliella salina, els carotenoides li confereixen un color vermell. Distribució: Preferentment es troben en aigües dolces. Anatomia, morfologia i organització cel·lular: Són tots unicel·lulars. Poden tenir o no una paret de cel·lulosa externa. Tenen 2, 4 o 8 flagells. Pigments: Contenen: —— Clorofil·les: Chl a i b, Mg-DVP. —— Carotenoides: luteïna, violaxantina, neoxantina, anteraxantina, ß-ß-carotè, ß-ε-carotè, i d’altres de caràcter més específic.
Escales temporals
densació atmosfèrica i, per tant, en el control del clima del planeta. A més, Phaeocystis produeix gran quantitat de mucopolisacàrid que excreta i pot acumular-se en forma d’escumes en superfície, i esdevenir un cas de proliferació nociva. Anatomia, morfologia i organització cel· lular: Normalment són coccoïdals, de 5-10 µm de diàmetre. Els coccolitoforals estan recoberts per unes plaquetes calcàries, els coccòlits, d’estructura ornamental podríem dir-ne «modernista» (vegeu la figura 1), els quals constitueixen un caràcter taxonòmic. El grup sintetitza crisolaminarina com a substància de reserva energètica. En el cas de Phaeocystis, el seu complex cicle de vida inclou la formació de colònies macroscòpiques que suren a la superfície. Pigments: Contenen una gran diversitat de pigments: —— Clorofil·les: Chl a, Mg-DVP, Chl c1, c2 i c3 en proporcions variables —— Carotenoides: tots contenen fucoxantina, diadinoxantina, diatoxantina i ß-ß-carotè; altres pigments segons les espècies són 19’-butanoiloxifucoxantina, 19’-hexanoiloxifucoxantina.
23
29/3/21 14:58
Elisa Berdalet
4. Proliferacions algals nocives (o harmful algal blooms) Un cas concret de la dinàmica del fitoplàncton i les microalgues en general són les proliferacions d’algues nocives (PAN, en català o castellà) o harmful algal blooms (HAB, en anglès) (Kudela et al., 2015). En determinades circumstàncies, l’abundància d’algunes espècies de microalgues assoleix nivells que poden perjudicar humans i altres organismes. El terme HAB és antropocèntric més que estrictament científic. Els fenòmens de HAB tenen una base natural, tot i que la pressió antròpica els afavoreix (eutrofització, ús excessiu de la costa que altera els patrons de circulació de l’aigua del mar i afavoreix el confinament dels organismes, la pèrdua de la biodiversitat, etc.). Els impactes negatius de les HAB poden ser deguts a la producció de substàncies tòxiques (biotoxines) que afecten els humans. Algunes biotoxines circulen per la xarxa tròfica i contaminen aliments (marisc, peixos), d’altres produeixen irritacions cutànies per contacte directe amb l’aigua, i d’altres s’aerosolitzen pel vent i les onades i produeixen irritacions respiratòries. A més del cost econòmic de l’assistència mèdica a les persones afectades, cal invertir en un monitoratge per a detectar a temps la presència dels organismes tòxics i les seves toxines per evitar que aliments contaminats arribin a la taula dels consumidors. A més, cal fer-ne un estudi intens i multidisciplinar, que inclogui el cost econòmic dels efectes directes i indirectes que comporta la prohibició d’extraure i comercialitzar mariscs o peixos contaminats amb les toxines. També hi ha HAB d’espècies ictiotòxiques (Chattonella antiqua, Fibrocapsa japonica, Pseudochattonella farcimen) que ocasionen mortaldats de peixos en zones d’aqüicultura o pesqueries naturals. D’altres HAB afecten la fauna marina (encara que no tingui un valor econòmic), com és el cas de les proliferacions d’Ostreopsis (vegeu la figura 2) que, ja sigui per producció de toxines o per limitació de la disponibilitat d’oxigen, causen danys a la fauna bentònica amb mobilitat limitada (crancs, eriçons). L’Ostreopsis i d’altres espècies com Phaeocystis excreten mucopolisacàrids que, en forma d’escumes, s’acumulen en grans quantitats en superfície i alteren la qualitat de l’aigua en zones turístiques. L’arribada massiva de sargassos (macroalgues del gènere Sargassum) a les platges del Carib i la costa oest d’Àfrica és també un cas de HAB. La descomposició del sargàs produeix problemes de salubritat amb
24
Revista TSCB 70.indd 24
impactes negatius en el turisme d’aquelles zones. El fenomen de les HAB es produeix en tots els ambients aquàtics (aigua dolça, salobre i marina) i a totes les latituds. En general, aquestes proliferacions comporten canvis en el color de l’aigua, que pren el color de l’alga que hi prolifera, sigui verda, blava, groga, marró o vermella. Tradicionalment s’ha utilitzat el terme marees roges, associat més pròpiament referit a les proliferacions de dinoflagel· lades, grup particularment implicat en aquest fenomen.
Les HAB són esdeveniments discrets associats a una proliferació de microalgues, cianobacteris o macroalgues que els humans perceben com a perjudicials per a la seva salut o per als serveis ecosistèmics. La proliferació implica un augment d’abundància en relació amb un nivell de fons normal que pot ser baix o alt, depenent de l’organisme.
La figura 2 il·lustra exemples diversos de proliferacions. En general, les HAB són proliferacions tòxiques amb una elevada quantitat de cèl·lules. En són exemples les proliferacions de Karenia brevis, al golf de Mèxic i Florida (vegeu la figura 2), on de manera recurrent assoleixen grans densitats i persisteixen durant alguns mesos. Aquestes proliferacions són conegudes popularment com marees roges de Florida (Florida red tides). Conegudes des de temps ancestrals, els colonitzadors europeus ja van ser informats per les tribus indígenes que el moviment alterat dels peixos podia indicar que havien ingerit el compost neurotòxic que ara sabem que produeix la K. brevis. A més aquestes proliferacions causen irritacions respiratòries i altres símptomes neurològics per inhalació. Aquests impactes en la salut han estat motiu d’estudi multidisciplinar, multiagència i amb gran inversió econòmica per tal de prevenir els impactes sobre la salut humana i el medi ambient (vegeu, per exemple, Fleming et al., 2011). Per a més detalls podeu consultar https://oceanservice.noaa.gov/news/redtide- florida/. També són exemples de proliferacions tòxiques amb elevada biomassa (vegeu la figura 2) les proliferacions de cianobacteris en aigües dolces que contaminen l’aigua de beure
(Burford et al., 2019) i/o limiten la qualitat de l’ecosistema aquàtic, les d’Ostreopsis que afecten sobretot el bentos, les d’espècies ictiotòxiques que produeixen mortaldats de peixos o les que produeixen escumes que suren en superfície. Un cas particular de HAB són les produïdes per espècies presents en baixes concentracions a l’aigua però que són altament tòxiques. El paradigma d’aquestes proliferacions són les de la dinoflagel·lada Dinophysis, la qual produeix la toxina diarreica (vegeu la taula 1). En no assolir alts nivells de biomassa, les proliferacions de Dinophysis no comporten canvis en el color de l’aigua, però la seva elevada toxicitat fa que a partir de cent cèl·lules per litre es declari l’alerta en les zones de producció de bivalves. A més, Dinophysis es concentra en uns pocs centímetres en la columna d’aigua formant «capes fines» que podrien determinar una considerable bioacumulació de toxines en els musclos. Una altra dinoflagel·lada altament tòxica però que està present en baixes concentracions en el medi és la bentònica Gambierdiscus. La seva toxina es bioacumula en peixos i provoca la síndrome de la ciguatera, malaltia endèmica en zones tropicals (vegeu la taula 1). En la secció 2 s’han presentat alguns dels principals grups de microalgues que existeixen en la actualitat. En conjunt, estaríem parlant de diversos milers d’espècies de microalgues descrites, de les quals només unes tres-centes estan involucrades en esdeveniments nocius. Se’n pot trobar informació concreta al web de la Comissió Oceanogràfica Intergovernamental de la UNESCO, http://www.marinespecies. org/hab/index.php, que té un programa específic sobre HAB. Més de cent d’aquestes espècies, sense tenir gaire aspectes fisiològics, filogenètics o estructurals en comú, produeixen toxines naturals potents i persistents que poden ser perjudicials o fins i tot letals per als humans i els animals (Sournia, 1995; Moestrup et al., 2009). Aquestes toxines són compostos químicament molt diversos, sintetitzats per espècies tòxiques, i que s’han associat amb diferents síndromes en humans (vegeu la taula 1). Es coneixen menys les que afecten negativament a certs peixos, aus marines, rèptils i mamífers marins. Com s’ha mencionat, en ser fenòmens naturals és difícil evitar amb seguretat que es produeixin. Tanmateix, l’adequada cura i utilització sostenible del medi ambient és fonamental per a reduir la tendència a l’augment de les HAB observada en els darrers anys (en part relacionada amb l’escalfament global del
Treballs de la Societat Catalana de Biologia, 70: 18-26
29/3/21 14:58
Colors d’aigua, colors d’algues
Taula 1. Principals síndromes tòxiques en humans. Adaptat de Berdalet et al., 2016, on es donen més detalls i referències específiques per a cada síndrome Síndrome
Biotoxina
Organisme tòxic
Símptomes
Via d’exposició
Àrea geogràfica afectada / risc a Catalunya (*)
Enverinament amnèsic
Àcid domoic i isòmers
Pseudo-nitzschia spp., Nitzschia
Vòmits, diarrea, mal de cap, tremolors, confusió, desorientació, pèrdua temporal de memòria
Consum de marisc i peix
Mundial *
Enverinament per azaspiràcid
Azaspiràcid i derivats
Amphidoma languida, Azadinium spinosum, Azadinium poporum
Nàusees, vòmits, diarrea, rampes abdominals; efectes més greus en ratolins
Consum de marisc
Europa, Amèrica del Nord
Ciguatera
Ciguatoxina i maitotoxina
Gambierdiscus spp., Fukuyoa spp.
Nàusees, vòmits, diarrea, entumiment de boca i extremitats; símptomes neurològics persistents
Consum de peix i marisc Endèmica en el tròpic, procedent d’esculls de corall expandint-se a latituds temperades. Casos recents a les Canàries i Madeira
Enverinament diarreic
Àcid okadaic Dinophysis spp., i derivats Prorocentrum lima (dinofisiotoxines)
Nàusees, vòmits, diarrea greu, rampes abdominals, dificultat respiratòria
Consum de marisc
Mundial *
Enverinament neurotòxic i irritacions respiratòries
Brevetoxines
Karenia brevis
Intoxicació per marisc: nàusees, distèrmia, debilitat muscular i vertigen. Exposició a aerosols: irritació respiratòria i ocular
Consum de marisc; inhalació d’aerosols marins durant les fases actives de la proliferació
Golf de Mèxic, Japó, Xina, Corea, Nova Zelanda
Palitoxicosi (per intoxicació alimentària) i d’altres símptomes irritatius
Palitoxina isobàrica, ostreocina, ovatoxina
Ostreopsis spp.
Intoxicació alimentària: vòmits, diarrea, rampes abdominals, letargia, pessigolleig dels llavis. Exposició a aerosols: irritació respiratòria i cutània lleu. Irritacions cutànies
Consum de marisc; inhalació d’aerosols marins; contacte directe amb l’aigua de mar
Intoxicacions alimentàries als tròpics; irritacions respiratòries i cutànies a les platges del Mediterrani i el Brasil *
Enverinament paralitzant
Saxitoxina i derivats
Alexandrium spp., Pyrodinium bahamense var. compressum i d’altres espècies, Gymnodinium catenatum, algunes macroalgues calcàries i vermelles
Nàusees, vòmits, diarrea, entumiment i formigueig als llavis, boca, cara i coll. En casos greus, paràlisi dels músculs del tòrax i de l’abdomen i mort
Consum de mariscs, crustacis, peixos
Mundial *
Intoxicacions relacionades amb l’aigua de beure
Microcistines, cianotoxines, saxitoxines, anatoxines
Dolichospermum, Microcystis, Planktothrix
Gastroenteritis, afectacions hepàtiques i renals greus, neurotoxicitat
Aigua de beure contaminada, en alguns casos han contaminat solucions d’hemodiàlisi
Mundial *
planeta) i dels seus impactes. Els esforços per a detectar-les amb antelació i el millor coneixement de la dinàmica de les HAB són eines imprescindibles de prevenció. A Catalunya existeix un sistema de monitoratge de les espècies productores de HAB en aigües dolces, platges i zones d’aqüicultura (peixos, bivalves; en particular el delta de l’Ebre) finançat per la Generalitat des de 1987. Entre els tàxons productors de HAB n’hi ha de tòxics o potencialment tòxics com ara Pseudo- nitzschia, Alexandrium catenella, A. minutum, Ostreopsis cf. ovata, Gyrodinium impudi-
cum, Dinophysis, Karlodinium spp., i de no tòxics com Alexandrium taylori i Phaeocystis spp. Una visió sintètica de les HAB a Catalunya pot trobar-se a Estrada (2011). L’establiment de xarxes de monitoratge i observatoris sentinella apareix com a prioritari a escala internacional (GlobalHAB: http://www. globalhab.info; GOOS: http://www.goosocean. org; Anderson et al. 2019). Aquesta observació està en part fonamentada en la detecció mitjançant sistemes òptics i satèl·lits: és a dir, observem el color de les aigües, que ens parlen del color de les algues, del color de la vida.
Treballs de la Societat Catalana de Biologia, 70: 18-26
Revista TSCB 70.indd 25
Agraïments Agraeixo la invitació dels editors a participar en aquest volum monogràfic de la Societat Catalana de Biologia. El meu agraïment també als revisors, els suggeriments dels quals han contribuït a una millor versió final, a la doctora Lluïsa Cros i la doctora Laura Arin per llur acurada lectura del text final, i en especial al doctor Francesc Peters per la realització d’una composició atractiva i estètica de les imatges presentades.
25
29/3/21 14:58
Elisa Berdalet
Bibliografia Anderson, C. R. [et al.] (2019). «Scaling up from regional case studies to a global harmful algal bloom observing system». Front. Mar. Sci., 6: 250. DOI: 10.3389/fmars. 2019.00250. Arin, A. [et al.] (2014). «Foam events due to a Phaeocystis bloom along the Catalan Coast (NW Mediterranean)». Harmful Algae News, 48: 14-15. Berdalet, E. [et al.] (2016). «Marine harmful algal blooms, human health and wellbeing: Challenges and opportunities in the 21st century». J. Mar. Biol. Ass. UK, 96: 61-91. Burford, M. A. [et al.] (2019). Solutions for managing cyanobacterial blooms: A scientific summary for policy makers. IOC/INF-1382. París: IOC/UNESCO. Chisholm, S. W. [et al.] (1988). «A novel free-living prochlorophyte occurs at high cell concentrations in the oceanic euphotic zone». Nature, 334: 340-343. DOI: 10.1038/334340a0. Delwiche, C. F. (1999). «Tracing the thread of plastid diversity through the tapestry of life». Am. Nat., 154: S164-S177. Dickey, T. D. (2001). «The role of new technology in advancing ocean biogeochemical research». Oceanography, 14: 108-120. Estrada, M. (2011). Ecologia de les marees roges. Discurs de recepció com a membre numerària de la Secció de
26
Revista TSCB 70.indd 26
Ciències Biològiques. Barcelona: Institut d’Estudis Catalans. També disponible en línia a: <https:// publicacions.iec.cat/repository/pdf/00000225/ 00000100.pdf>. Fleming, L. [et al.] (2011). «Review of Florida red tide and human health effects». Harmful Algae, 10: 224-233. Goericke, R.; Repeta, D. J. (1992). «The pigments of Prochlorococcus marinus: The presence of divinyl chlorophyll a and b in a marine prokaryote». Limnol. Oceanogr., 37: 425-433. Jeffrey, S. W. [et al.] (2011). «Microalgal classes and their signature pigments». A: Roy, S. [et al.] (ed.). Phytoplankton pigments: Characterization, chemotaxonomy and applications in oceanography. Cambridge: Cambridge University Press: SCOR, 3-77. Jeffrey, S. W.; Wright, S. W. (2006). «Photosynthetic pigments in marine microalgae: Insights from cultures and the sea». A: Subba Rao, D. V. (ed.). Algal cultures, analogues of blooms and applications. Enfield: Science Publishers. Kudela, R. M. [et al.] (2015). Harmful algal blooms. A scientific summary for policy makers. IOC/INF-1320. París: IOC/UNESCO. Margalef, R. (1978). «Life-forms of phytoplankton as survival alternatives in an unstable environment». Oceanologica Acta, 1: 493-509.
Moestrup, Ø. [et al.] (2009). IOC-UNESCO Taxonomic reference list of harmful micro algae [en línia]. <http://www.marinespecies.org/hab> [Consulta: 15 novembre 2020]. Park, M. G. [et al.] (2006). «First successful culture of the marine dinoflagellate Dinophysis acuminata». Aquat. Microb. Ecol., 45: 101-106. Rippka, R. [et al.] (2000). «Prochlorococcus marinus Chisholm et al. 1992 subsp. pastoris subsp. nov. strain PCC 9511, the first axenic chlorophyll a2/b2-containing cyanobacterium (Oxyphotobacteria)». Intern. J. System. Evolut. Microbiol., 50: 1833-1847. Sabine, C. L.; Feely, R. A. (2007). «The oceanic sink for carbon dioxide». A: Reay, D. [et al.] (ed.). Greenhouse gas sinks. Oxfordshire: CABI. Sournia, A. (1995). «Red tide and toxic marine phytoplankton of the world ocean: An inquiry into biodiversity». A: Lassus P. [et al.] (ed.). Harmful marine algal blooms: Proceedings of the 6th International Conference on Toxic Marine Phytoplankton, October 1993, Nantes, France. París: Lavoisier, 103-112. Stommel, H. (1963). «Varieties of oceanographic experience». Science, 139: 572-576. Thomas, C. R. (ed.) (1997). Identifying marine phytoplankton. Cambridge: Academic Press.
Treballs de la Societat Catalana de Biologia, 70: 18-26
29/3/21 14:58
Les comunitats marines dominades per animals sèssils Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso
DOI: 10.2436/20.1501.02.188
Institut de Ciències del Mar (ICM-CSIC)
ISSN (ed. impresa): 0212-3037
Correspondència: Josep-Maria Gili. Institut de Ciències del Mar (ICM-CSIC). Passeig Marítim de la Barceloneta, 37-49. 08003 Barcelona. Adreça electrònica: gili@icm.csic.es.
http://revistes.iec.cat/index.php/TSCB
ISSN (ed. digital): 2013-9802 Rebut: 11/06/2019 Acceptat: 09/09/2019
Resum
Marine communities dominated by sessile animals
En els darrers anys s’ha fet evident el paper primordial dels organismes marins sèssils en els processos de transferència d’energia en els ecosistemes litorals i de plataforma. Molts dels coneguts com a suspensívors bentònics empren com a font alimentària la «fracció fina» de la matèria en suspensió o microplàncton, i això podria ser important per entendre l’èxit d’aquests organismes en diverses localitzacions del planeta. A causa de la seva gran abundància, les comunitats de suspensívors capturen elevades quantitats de partícules i poden regular directament la producció primària, regulant alhora indirectament la producció secundària a les cadenes alimentàries del litoral i de plataforma. Aquest article se centra principalment a revisar la informació disponible relacionada amb les funcions que realitzen els suspensívors bentònics a les comunitats litorals i de plataforma, i en destaca la rellevància ecològica.
Summary
Paraules clau: suspensívor, bentònic, sèssil, sèston, transferència d’energia.
In recent years, the role of marine sessile organisms in the energy transfer processes in coastal ecosystems and the continental shelf has become evident. Many of those known as benthic suspension feeders use the “fine fraction” of matter in suspension or microplankton as a food source and this could be important for an understanding of these organisms’ success in various locations on the planet. Because of their great abundance, suspension feeder communities capture large amounts of particles and can regulate primary production directly, while indirectly regulating secondary production in the food chains of the coastline and the continental shelf. This paper reviews the available information on the functions performed by benthic suspension feeders in the coastal and platform communities, emphasizing their ecological importance.
Keywords: suspension feeder, benthic, sessile, seston, energy transfer.
1. De què estem parlant? La matèria orgànica entra als oceans a través de productors primaris i de les aportacions fluvials, que juntament amb els productes de l’activitat biològica d’aquells generen l’aliment disponible més abundant per als organismes heteròtrofs a l’oceà: el sèston. Les propietats físiques de l’aigua de mar permeten que les partícules i molts organismes vius es mantinguin en suspensió i creen així un nínxol ecològic per a una estratègia tròfica que no es produeix a la terra: els suspensívors (Jørgensen, 1990). En la columna d’aigua hi predominen petites partícules i cèl·lules que proporcionen aliment per a consumidors primaris i substrat per a bacteris. Els suspensívors bentònics, és a dir les espècies bentòniques que es nodreixen de l’aliment en suspensió, són comuns en tots els hàbitats marins, des de fons litorals de sorra fins a fons de fang profunds i són també el principal component animal de les comunitats marines en substrats durs. L’alimentació dels suspensívors bentònics pot tenir un impacte pronunciat sobre el pasturatge de fitoplàncton a moltes zones marines on les taxes de filtració de la població són nor-
malment de 1-10 m3 per m2 de comunitat, o més, corresponents a un volum que pot ser diverses vegades el de la columna d’aigua (Ostroumov, 2005). La comprensió de la dieta natural d’algunes espècies i de com aquesta dieta varia, tant amb els canvis en la disponibilitat de la columna d’aigua com amb els canvis en les condicions hidrodinàmiques, suggereix que aquestes comunitats bentòniques poden tenir un paper regulador important en l’ecosistema (Gili i Coma, 1998). Moltes comunitats bentòniques són riques en espècies i taxonòmicament molt diverses. Alguns estudis mostren que a diverses regions del planeta el bentos està representat principalment per una biomassa extraordinàriament gran d’esponges i cnidaris, acompanyada d’altres contribucions menors com ara equinoderms, tunicats i briozous (Gili et al., 2001). Aquests grups, principalment els suspensívors bentònics, presenten adaptacions a les condicions ambientals particulars de les regions de plataforma i talús (Ambroso et al., 2017). Aquestes comunitats són molt estructurades, amb una alta diversitat funcional (com per exemple ser formadores d’hàbitat i fer la funció de viver o nurTreballs de la Societat Catalana de Biologia, 70: 27-32
Revista TSCB 70.indd 27
sery, entre d’altres) i un grau considerable d’heterogeneïtat (patchiness) en la composició d’espècies a escales espacials petites o intermèdies (Grinyó et al., 2016) (vegeu la figura 1). A continuació, es presentaran alguns arguments per entendre l’èxit ecològic de les comunitats de suspensívors bentònics, basats en les troballes en ecosistemes temperats, tropicals i antàrtics. Amb aquesta finalitat, es posarà l’accent en els aspectes relacionats amb l’ecologia tròfica i les condicions ambientals que faciliten els processos de transferència d’energia entre els sistemes de columna d’aigua i el bentos. En particular, es volen adreçar les qüestions següents: la formació de matèria orgànica a la columna d’aigua és significativa per als suspensívors?, què sabem del destí d’aquest material orgànic i del que està disponible a les aigües costaneres o als fons marins?, quins processos ambientals són responsables de la disponibilitat d’aliments per als organismes bentònics (transport vertical, resuspensió o advecció lateral)? i fins a quin punt l’abundància i l’heterogeneïtat de les comunitats de suspensívors és conseqüència dels factors biològics i ambientals?
27
29/3/21 14:58
Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso
0,1 µm
1 µm
10 µm
100 µm
+
1 mm
+ + +
1 cm
–
–
160-180 l–1·h–1·m–2
+ + + + –
–
900-4500 l–1·h–1·m–2 480-4000 l–1·h–1·m–2
+ +
+
+ +
–
+
+
+ – 900-3000 l ·h ·m
–
+
+
+
+ + 500-2000 l ·h ·m
–
+
+
+
+
–1
–1
–1
–1
–2
–2
600-4400 l–1·h–1·m–2
Figura 1. Representació gràfica de tres comunitats dominades per suspensívors bentònics en indrets on estan molt desenvolupades: Antàrtic, Mediterrani i Carib. Dibuix de Jordi Corbera.
Figura 2. Diagrama de la mida i diversitat de preses que capturen els diferents grups de suspensívors sèssils. A la gràfica inferior, de dalt a baix: esponges, mol·luscs bivalves, ascidis, crustacis balànids, hidrozous, antozous. Unitats: individus per litre per hora que circula per un m2 de la comunitat. Figura original de R. Rield, 1966, modificada per Jordi Corbera.
2. Els suspensívors bentònics com una estratègia eficient
plantejar-se tres aspectes per postular que els suspensívors bentònics es troben entre els organismes amb una estratègia òptima en el context marí. En primer lloc, el cost energètic per capturar l’aliment és pràcticament nul en els suspensívors anomenats passius, ja que s’estima que representa al voltant del 4 % de la demanda total d’energia d’aquests organismes (Riisgård i Larsen, 2010). En segon lloc, es tracta d’organismes omnívors que pràcticament només seleccionen per la mida de la presa o de les estructures de captura (tentacles,
En general, es pot dir que els suspensívors bentònics han aconseguit un èxit ecològic excepcional, basat presumiblement en dues característiques: el baix cost i l’alta eficiència dels mecanismes de captura d’aliments (Shimeta i Jumars, 1991). En el marc d’una teoria òptima sobre l’alimentació, les espècies que gasten quantitats baixes d’energia en la recerca d’aliment tenen un gran èxit ecològic (Coma et al., 2000). Cal
28
Revista TSCB 70.indd 28
filtres, òsculs, etc.) dels animals que depenen del flux per nodrir-se (Hughes 1980). Tercer, la majoria d’invertebrats bentònics han de desenvolupar un enfocament diferent al dels consumidors vàgils (que es poden moure lliurement) per optimitzar la captura d’aliment i tenir èxit en el mateix entorn. Les dietes no selectives semblen ser l’estratègia més adequada per als suspensívors litorals (Ros i Gili, 2015). Fabricius et al. (1995) trobaren que el fitoplàncton i la matèria orgànica particulada podien tenir un paper extrema-
Treballs de la Societat Catalana de Biologia, 70: 27-32
29/3/21 14:58
Les comunitats marines dominades per animals sèssils
Les partícules i les cèl·lules molt petites dominen les comunitats de la columna d’aigua (Brown et al., 2004). Moltes partícules orgàniques són colonitzades per microorganismes que posteriorment proporcionen aliment de gran qualitat nutritiva. Les comunitats microbianes són el principal contribuent a les comunitats de plàncton pelàgic en termes de biomassa i de producció (Platt et al., 1983). A conseqüència d’aquesta rellevància, s’ha dut a terme una important investigació per estudiar la dinàmica d’aquestes comunitats de plàncton en la columna d’aigua i les seves interaccions tròfiques amb altres grups (Azam et al., 1983). Els microorganismes associats a les partícules, junt amb aquestes, són una font fonamental en la dieta dels organismes suspensívors bentònics. A més, la major part de la producció primària dels vegetals (fitoplàncton, microalgues i plantes vasculars) no és consumida pels herbívors sinó que va cap a la cadena alimentària del detritus (Fuhrman i Caron, 2016). La qualitat del detritus depèn de la qualitat dels compostos assimilables que conté i del seu origen. Moltes partícules de restes de vegetals colonitzades per microorganismes proporcionen més valor nutritiu, i a més contenen una alta concentració de nitrogen. La taxa d’alimentació depèn de la qualitat i la quantitat d’aliments. Un altre factor que pot modificar les taxes d’alimentació és la temperatura, tot i que els animals adaptats a temperatures molt fredes no mostren una relació positiva amb l’augment de temperatura (Kamil et al., 2012).
4. El paper de la «fracció fina» Algunes comunitats bentòniques són capaces d’eliminar una proporció substancial del fitoplàncton de la massa d’aigua que circula al vol-
5. Acoblament físic, biològic i sedimentari L’oportunitat de capturar l’aliment depèn en gran mesura de les condicions hidrogràfiques (Shimeta i Jumars, 1991) en rangs de fluxos d’aigua que determinen la diversitat, la biomassa, l’estructura i la distribució de les comunitats de suspensívors (vegeu la figura 3). Els processos físics actius a l’extrem de la plataforma continental donen lloc a un arrossegament de sediments i al seu transport pendent avall del talús. Com a resultat del canvi de pendent i de l’acció dels fronts hidrogràfics al contactar amb la zona final de la plataforma continental, es formen estructures de capes nefeloides (ca-
0 980 g m–2
1.582 g m–2
1.975 g m–2
2.800 g m–2
5
10
15
20
500
8 57 85 74 65
Ascidiacea Crustacea Bryozoa Mollusca Polychaeta
6
Anthozoa
5
Hydrozoa
44
Porifera
12
Algae
400
300 9 1 2 5 2
200
100
0
6 1 4 1 4
15
2 1 12 6 3 3 4 8 1
Figura 3. Representació gràfica de la variació en la biomassa i el nombre d’espècies dels diferents grups d’organismes bentònics al llarg d’un gradient hidrodinàmic des de l’entrada fins a l’interior d’una cova submarina. A fora (dreta), comunitat del coral·ligen, a la zona mitjana, dos estadis de la comunitat de coves semifosques i, a l’interior, la comunitat de coves fosques. Unitats de biomassa en pes sec per m2; els números a l’esquerra de la barra de cada comunitat són el nombre d’espècies de cada grup (noms indicats en la barra més alta). Dibuix de Gili i Coma, 1998, modificat por Jordi Corbera. Treballs de la Societat Catalana de Biologia, 70: 27-32
Revista TSCB 70.indd 29
(Gili i Coma, 1998). La capacitat de les esponges d’aconseguir material orgànic dissolt és clara quan les espècies tenen bacteris simbionts però no ho és en espècies que no en presenten (Coppari et al., 2016).
Profunditat (m)
3. Sèston ergo partícules
tant dels seus òrgans filtrants. Molts invertebrats bentònics d’una varietat de fílums tenen la capacitat d’alimentar-se del pico-i el nanoplàncton de la columna d’aigua (Jørgensen et al., 1984). Alguns estudis sobre esponges com Mycale lingua al golf de Maine (Bell et al., 2015) o la gorgònia Pseudoplexaura porosa al Carib (Coma et al., 2015), així com amb altres espècies de la Mediterrània (Ribes et al., 1999a), han demostrat l’alta eficiència de pasturatge d’aquests invertebrats bentònics sobre les comunitats de petits organismes planctònics en aigües properes al fons. Alguns autors han descrit la capacitat dels invertebrats (principalment dels mol·luscs) d’alimentar-se de detritus. No obstant això, el detritus no sembla satisfer plenament els requeriments de carboni i nitrogen d’aquestes espècies de bivalves (Gray et al., 2019). La captació de matèria orgànica dissolta (DOM) es produeix en una àmplia gamma d’invertebrats
Biomassa (g m–2)
ment important en l’alimentació dels suspensívors. També s’observà una àmplia i variada dieta en altres grups de suspensívors bentònics com ara les esponges, ascídies i hidrozous (Morganti et al., 2017) (vegeu la figura 2). Els suspensívors presenten, per tant, una dieta més variada del que es creia, i fins i tot es disposa d’exemples en què les espècies podrien canviar la seva dieta davant de canvis ambientals (Fabricius et al., 1995). Aquesta plasticitat tròfica s’observa també en un canvi estacional de la mida de les preses, com s’ha constatat per exemple en diverses espècies de crinoideus del mar Roig o ascídies a la Mediterrània (Rutman i Fishelson, 1969).
29
29/3/21 14:58
Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso
pes d’aigua carregada de partícules de característiques físiques diferents de les de les capes del voltant) per sobre del fons i sovint associades a les termoclines o haloclines. Per exemple, al golf de Lleó les partícules fines es concentren majoritàriament en una capa nefeloide a prop del fons generada a prop de la desembocadura del riu Roine (Durrieu de Madron et al., 1990). A més de formar-se capes nefeloides, a les zones de pendent i a prop del fons els corrents es veuen alterats i es modifica la seva velocitat degut a l’heterogeneïtat del substrat (Canals et al., 2006). Aquestes condicions ambientals afavoreixen el desenvolupament de denses poblacions de suspensívors (Gori et al., 2011), com els bancs del corall Lophelia pertusa a tota la plataforma continental i al vessant nord-est de l’Atlàntic (Fink et al., 2015). Aquests bancs estan dominats per concentracions denses del corall associades a una fauna rica de suspensívors com esponges i briozous (Corbera et al., 2019) que desenvolupen comunitats bentòniques tridimensionals. Aquests conjunts densos viuen a zones amb un considerable moviment d’aigua i amb material suspès abundant, que indica zones d’alta energia. El seu domini en la zona del talús continental es pot comparar amb les diverses i denses comunitats de suspensívors bentònics que es troben en d’altres oceans, com és el cas de la plataforma oriental del mar de Weddell i el seu talús (Ambroso et al., 2017).
6. Vida en un sistema de límit (boundary system): resuspensió com a procés clau Un dels aspectes que han centrat l’interès dels científics marins durant els darrers anys és el dels processos que es produeixen a la capa d’aigua límit suprabentònica. Aquest sistema proper al fons representa un entorn diferent, amb una gran abundància de partícules i bacteris (Ritzrau i Thomsen, 1997). El paper dels suspensívors bentònics en els processos biològics que es produeixen a la capa límit suprabentònica és pràcticament desconegut, tot i que la seva activitat és evident, ja que filtren partícules i alliberen nutrients orgànics generats per processos metabòlics dels organismes bentònics. En els sistemes naturals, els efectes biològics influeixen fortament en les propietats inorgàniques dels substrats. Els sediments generalment estan coberts per biofilms microbians o per microalgues presents especialment en zones de la plataforma continental on arriba la llum (Meyer-Reil, 1994). Aquests biofilms solen aglutinar grans individuals de sediment i
30
Revista TSCB 70.indd 30
redueixen la possibilitat que siguin transportats per corrents. No obstant això, l’activitat biològica contínua, com ara el bombeig, la filtració i la resuspensió, podria reduir l’adhesió del gra i facilitar el transport de partícules. Aquest efecte sobre l’agregació de partícules per organismes bentònics hauria d’augmentar en àrees on són abundants, i facilitar la flotabilitat i el transport lateral de les partícules, fet que podria explicar la baixa concentració de matèria orgànica en els sediments (Stolzen bach, 1993).
7. Flux vertical versus transport horitzontal Els processos relacionats amb la descomposició orgànica a la capa límit bentònica es veuen afectats per l’advecció i la resuspensió. En estudis realitzats al mar de Barents (Thomsen, 1999), els fluxos laterals de partícules van ser de 2 a 3,7 vegades superiors als fluxos verticals de partícules determinats per dades obtingudes mitjançant una trampa de sediments. L’estabilitat de les poblacions de suspensívors bentònics depèn de la constància de les condicions hidrodinàmiques, però també de la producció pelàgica a la zona (Cau et al., 2016). Els mecanismes d’advecció o de transport passiu (com la sedimentació i la resuspensió) regulen la disponibilitat d’aliments, a petita i mitjana escala, per als organismes bentònics (Gili i Coma, 1998). Perquè el sèston estigui disponible contínuament per als suspensívors, la capa d’aigua que els envolta ha de ser renovada contínuament. El flux vertical no sempre subministra suficients aliments als animals bentònics. Els corrents propers del fons que puguin resuspendre, difondre i transportar lateralment, a grans distàncies, les partícules assentades prèviament tenen una gran rellevància en molts ecosistemes, inclosos els antàrtics. Aquests processos redistribueixen les partícules sedimentades i també algunes que ni tan sols es posen en contacte amb la superfície dels sediments (Donis et al., 2016). A més, no només es poden transportar partícules lleugeres, sinó també organismes com els foraminífers (Brunner i Biscaye, 1997).
8. Vida en poblacions: una estratègia de captura d’aliments a nivell individual, de colònia, de població i de comunitat A la part inferior de les estructures animals que estan exposades al flux, com l’eix d’un pennatulaci, la viscositat augmenta degut a l’increment de matèria orgànica fruit de l’acti-
vitat metabòlica dels animals sèssils (per exemple, productes d’excreció) i la turbulència també augmenta lleugerament i genera petits remolins (Vogel, 1994). La interferència amb el flux de corrent dona lloc a un efecte hidrodinàmic que pot ajudar a augmentar el temps de residència de partícules de preses potencials dels suspensívors. Una de les respostes evolutives més importants dels suspensívors ha estat la formació de poblacions monoespecífiques, que no només redueix la competència sinó que també millora les taxes de captura de les diferents colònies o individus de la població. Els experiments sobre alcionaris (McFadden, 1986) han demostrat que les taxes de captura de partícules varien entre colònies de diferents mides dins de la població. Això al seu torn dona lloc a un patró espacial determinat per la distància òptima entre colònies o individus. Bàsicament, s’ha observat que les colònies més grans són més eficients a taxes de flux més baixes, mentre que les colònies més petites són més eficients a majors velocitats de flux. La mida màxima i mitjana de la colònia en cada clapa es determina per la concentració total d’aliments i la intensitat del moviment de l’aigua (McFadden, 1986). En conseqüència, les poblacions creixeran més ràpidament i les colònies aconseguiran mides més grans a les zones exposades on el flux de corrent sigui moderat. Els nivells d’heterogeneïtat poblacional abasten un continu que va des de clapes monoespecífiques de suspensívors colonials o individuals fins a formacions complexes tridimensionals que comprenen comunitats amb alta diversitat d’espècies i funcions (vegeu la figura 5). A un extrem es troben els densos agregats de musclos, filtradors que es nodreixen principalment de fitoplàncton (Tuttle-Raycraft et al., 2017). A l’altre extrem es troben les complexes comunitats coral·lígenes de roques a la Mediterrània (Molina et al., 2016), els esculls de corall i moltes altres comunitats sublitorals formades per una diversitat d’organismes l’alimentació dels quals inclou des del zooplàncton fins al picoplàncton (Pile et al., 1996).
9. Estacionalitat en comunitats bentòniques: regulació per restriccions tròfiques Els cicles estacionals dels organismes bentònics estan estretament relacionats amb els processos de sedimentació, barreja vertical i regeneració de nutrients a les zones litorals (Coma et al., 2000). Al mateix temps, el bentos té una gran influència en la dinàmica de la columna
Treballs de la Societat Catalana de Biologia, 70: 27-32
29/3/21 14:58
Les comunitats marines dominades per animals sèssils
control de la temperatura sobre la reproducció de coralls (Babcock et al., 1986) i altres que atribueixen un paper clau als canvis estacionals del vent (Buck-Wiese et al., 2018).
100
(µg C polip–1 d–1) ×100
80
10. Impacte ecològic en ecosistemes costaners i de plataforma: una visió tròfica
60
40
20
0
Gen Feb Mar Respiració Creixement teixit Excreció
Abr
Mai
Jun
Jul
Creixement esquelet Reproducció
Ago
Set
Oct
Nov Des
Consum de zooplàncton Consum de microplàncton i nanoplàncton
Figura 4. Variació del balanç energètic al llarg d’un any de la gorgònia Paramuricea clavata. Es representen les despeses energètiques (respiració, creixement de teixit i esquelet, excreció i reproducció) en les barres, i les entrades (consum de preses) en les línies: zooplàncton, amb traç gruixut i nano- i microplàncton, amb traç fi. Gràfica a partir de dades de Coma, 1994.
d’aigua, tant en la dinàmica de les poblacions de plàncton com en la provisió de nutrients regenerats (Dame, 2012). En general, la producció secundària dels suspensívors bentònics en mars temperats i polars es caracteritza per una forta estacionalitat (Knox, 2006). Seguint els ritmes d’activitat de les poblacions de diverses espècies, s’han demostrat patrons estacionals similars en els ecosistemes temperats i freds (Ambroso et al., 2017). Els ritmes d’activitat de determinades espècies de suspensívors bentònics, per exemple, gorgònies, presenten patrons d’expansió i contracció dels pòlips. Els períodes d’expansió màxima de pòlips en una colònia donada estan estretament relacionats amb períodes de captura màxima de preses. Per contra, quan els pòlips es contrauen, el metabolisme es desaccelera; sembla ser una adaptació per restringir
la despesa energètica quan la disponibilitat de les preses és baixa (Sebens i DeRiemer, 1977). La variació estacional de la temperatura del mar ha estat àmpliament acceptada com el factor ambiental més important que controla la reproducció en invertebrats marins (Giese i Pearse, 1974). No obstant això, la inversió energètica en reproducció coincideix amb l’augment del subministrament d’aliment al bentos, fet que suggereix un control tròfic dels cicles de vida en molts organismes bentònics (Coma et al., 2000) (vegeu la figura 4). Els estudis sobre suspensívors bentònics, tant en entorns freds com temperats han demostrat que el control tròfic pot ser més adequat que la temperatura per entendre l’estacionalitat dels cicles de vida de la fauna marina. Pel que fa a les zones tropicals, hi ha un conflicte entre aquells autors que han proporcionat proves de
Treballs de la Societat Catalana de Biologia, 70: 27-32
Revista TSCB 70.indd 31
Com a resultat de la plasticitat tròfica assenyalada anteriorment, l’impacte depredador dels suspensívors bentònics en els ecosistemes litorals és superior al que s’havia suposat anteriorment. Per exemple, la gorgònia Paramuricea clavata a les illes Medes, al Mediterrani, captura diàriament fins al 22 % de les diatomees, el 9 % dels nanoeucariotes, el 26 % dels dinoflagel·lats, el 99 % dels ciliats i el 10 % de la matèria orgànica particulada (MOP) detrítica suspesa de l’aigua adjacent al fons (Ribes et al., 1999b). Els estudis sobre l’ecologia del consum de plàncton per cnidaris (hidrozous, anemones de mar, meduses i coralls) en altres latituds han revelat dues estratègies de vida diferents (Gili i Coma, 1998): els antozous es caracteritzen per tenir taxes de creixement lentes, alta longevitat i, sovint, a les aigües tropicals, associacions amb algues simbionts. Els hidrozous, per contra, es caracteritzen per un creixement ràpid, un temps de vida curt (colònies efímeres) i una menor freqüència d’associacions simbiòtiques. El segon grup està relacionat amb el «sistema de regeneració» proposat per Eppley i Peterson (1979): un sistema molt estable al llarg de tot l’any, en el qual també els processos de sedimentació i resuspensió tenen un impacte important en les estratègies d’alimentació de suspensívors sèssils.
Agraïments Treball desenvolupat en el marc del projecte de col·laboració entre l’Institut de Ciències del Mar (CSIC) de Barcelona i l’Obra Social la Caixa El Mar a Fons.
31
29/3/21 14:58
Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso
Bibliografia Ambroso, S. [et al.] (2017). «Pristine populations of habitat-forming gorgonian species on the Antarctic continental shelf». Sc. Rep., 7: 12251. Azam, F. T. [et al.] (1983). «The ecological role of water column microbes in the sea». Mar. Ecol. Prog. Ser., 10: 257-263. Babcock, R. C. [et al.] (1986). «Synchronous spawnings of 105 scleractinian coral species on the Great Barrier Reef». Mar. Biol., 90: 379-394. Bell, J. J. [et al.] (2015). «Sediment impacts on marine sponges». Mar. Pollut. Bull., 94: 5-13. Brunner, C. A.; Biscaye, P. E. (1997). «Storm-driven transport of foraminifers from the shelf to the upper slope, southern Middle Atlantic Bight». Cont. Shelf Res., 17: 491-508. Buck-Wiese, H. [et al.] (2018). «Patterns in sexual reproduction of the dominant scleractinian corals at Rapa Nui (Easter Island): Pocillopora verrucosa and Porites lobata». Aquat. Biol., 27: 1-11. Canals, M. [et al.] (2006).«Flushing submarine canyons». Nature, 444: 354-357. Cau, A. [et al.] (2016). «Habitat constraints and self- thinning shape Mediterranean red coral deep population structure: Implications for conservation practice». Sci. Rep., 6: 23322. <http://doi.org/10.1038/ srep23322>. Coma, R. (1994). Evaluación del balance energético de dos especies de cnidarios bentónicos. Tesi (doctorat). Barcelona: Universitat de Barcelona. Coma, R. [et al.] (1994). «Feeding and prey capture cycles in the aposymbiotic gorgonian Paramuricea clavata». Mar. Ecol. Prog. Ser., 115: 257-270. — (2000). «Seasonality in coastal benthic ecosystems». Trends Ecol. Evol., 15: 448-453. — (2015). «Natural heterotrophic feeding by a temperate octocoral with symbiotic zooxanthellae: A contribution to understanding the mechanisms of die-off events». Coral Reefs, 34: 549-560. Coppari, M. [et al.] (2016). «The role of Mediterranean sponges in benthic-pelagic coupling processes: Aplysina aerophoba and Axinella polypoides case studies». J. Exp. Mar. Biol. Ecol., 477: 57-68. Corbera, G. [et al.] (2019). «Ecological characterisation of a Mediterranean cold-water coral reef: Cabliers Coral Mound Province (Alboran Sea, western Mediterranean)». Prog. Oceanogr., 175: 245-262. Dame, R. F. (2012). Ecology of marine bivalves: An ecosystem approach. Boca Raton: CRC Press. Donis, D. [et al.] (2016). «Assessing benthic oxygen fluxes in oligotrophic deep sea sediments (HAUSGARTEN observatory)». Deep Sea Res. PT I, 111: 1-10. Durrieu de Madron, X. [et al.] (1990). «Hydrographic structure and nepheloid spatial distribution in the
32
Revista TSCB 70.indd 32
Gulf of Lions continental margin». Cont. Shelf Res., 10: 915-929. Eppley, R. W.; Peterson, B. J. (1979). «Particulate organic matter flux and planktonic new production in the deep ocean». Nature, 282: 677-680. Fabricius, K. E. [et al.] (1995). «Flow-dependent herbivory and growth in zooxanthellae-free soft corals». Limnol. Oceanogr., 40: 1290-1301. Fink, H. G. [et al.] (2015). «Spatio-temporal distribution patterns of Mediterranean cold-water corals (Lophelia pertusa and Madrepora oculata) during the past 14,000 years». Deep Sea Res. PT I, 103: 37-48. Giese, A. C.; Pearse, J. S. (1974). Reproduction of marine invertebrates: Acoelomate and pseudocoelomate metazoans. Nova York: Academic Press. Gili, J. M. [et al.] (2001). «Are Antarctic suspension-feeding communities different from those elsewhere in the world?». Polar Biol., 24: 473-485. Gili, J. M.; Coma, R. (1998). «Benthic suspension feeders: Their paramount role in littoral marine food webs». Trends Ecol. Evol., 13: 316-321. Gori, A. [et al.] (2011). «Spatial distribution patterns of the gorgonians Eunicella singularis, Paramuricea clavata, and Leptogorgia sarmentosa (Cape of Creus, Northwestern Mediterranean Sea)». Mar. Biol., 158: 143-158. Gray, M. [et al.] (2019). «Spatially explicit estimates of in situ filtration by native oysters to augment ecosystem services during restoration». Estuar. Coasts, 42: 792805. Grinyó, J. [et al.] (2016). «Diversity, distribution and population size structure of deep Mediterranean gorgonian assemblages (Menorca Channel, Western Mediterranean Sea)». Prog. Oceanogr., 145: 42-56. Hughes, R. N. (1980). «Optimal foraging theory in the marine context». Oceanogr. Mar. Biol. Ann. Rev., 18: 423-481. Jørgensen, C. B. (1990). Bivalve filter feeding: Hydrodynamics, bioenergetics, physiology and ecology. Fredensborg (Dinamarca): Olsen & Olsen. Jørgensen, C. B. [et al.] (1984). «Ciliary and mucus net filter feeding with special reference to fluid mechanical characteristics». Mar. Ecol. Progr. Ser., 15: 283-292. Kamil, A. C. [et al.] (ed.) (2012). Foraging behavior. Berlín: Springer Science & Business Media. Knox, G. A. (2006). Biology of the Southern Ocean. Boca Raton: CRC Press. McFadden, C. S. (1986). «Colony fission increases particle capture rates of a soft coral: Advantages of being a small colony». J. Exp. Mar. Biol. Ecol., 103: 1-20. Meyer-Reil, L. A. (1994). «Microbial life in sedimentary biofilms – the challenge to microbial ecologists». Mar. Ecol. Progr. Ser., 112: 303-311.
Molina, A. C. [et al.] (2016). «Combining literature review, acoustic mapping and in situ observations: An overview of coralligenous assemblages in Liguria (NW Mediterranean Sea)». Sci. Mar., 80: 7-16. Morganti, T. [et al.] (2017). «Trophic niche separation that facilitates co‐existence of high and low microbial abundance sponges is revealed by in situ study of carbon and nitrogen fluxes». Limnol. Oceanogr., 62: 1963-1983. Ostroumov, S. A. (2005). «Some aspects of water filtering activity of filter-feeders». Hydrobiologia, 542: 275-286. Pile, A. J. [et al.] (1996). «In situ grazing on plankton < 10 µm by the boreal sponge Mycale lingua». Mar. Ecol. Progr. Ser., 141: 95-102. Platt, T. [et al.] (1983). «Photosynthesis of picoplankton in the oligotrophic ocean». Nature, 301: 702-704. Ribes, M. [et al.] (1999a). «Heterogeneous feeding in benthic suspension feeders: The natural diet and grazing rate ofthe temperate gorgonian Paramuricea clavata (Cnidaria: Octocorallia) over a year cycle». Mar. Ecol. Progr. Ser., 183: 125-137. — (1999b). «Natural diet and grazing rate of the temperate sponge Dysidea avara (Demospongiae, Dendroceratida) throughout an annual cycle». Mar. Ecol. Progr. Ser., 176: 179-190. Riedl, R. (1966). Biologie der Meereshöhlen. Hamburg; Berlín: Paul Parey. Riisgård, H. U.; Larsen, P. S. (2010). «Particle capture mechanisms in suspension-feeding invertebrates». Mar. Ecol. Progr. Ser., 418: 255-293. Ritzrau, W.; Thomsen, L. (1997). «Spatial distribution of particle composition and microbial activity in the benthic boundary layer (BBL) of the Northeast Water Polynya». J. Mar. Syst., 10: 415-428. Rutman, J.; Fishelson, L. (1969). «Food composition and feeding behavior of shallow-water crinoids at Eilat (Red Sea)». Mar. Biol., 3: 46-57. Sebens, K. P.; DeRiemer, K. (1977). «Diel cycles of expansion and contraction of coral reef anthozoans». Mar. Biol., 43: 247-256. Shimeta, J.; Jumars, P. A. (1991). «Physical mechanisms and rates of particle capture by suspension feeders». Oceanogr. Mar. Biol. Ann. Rev., 29: 191-257. Stolzenbach, K. D. (1993). «Scavenging of small particles by fast-sinking porous aggregates». Deep Sea Res. PT I, 40: 359-369. Thomsen, L. (1999). «Processes in the benthic boundary layer at continental margins and their implication for benthic carbon cycle». J. Sea. Res., 41: 73-86. Tuttle-Raycraft, S. [et al.] (2017). «Suspended solid concentration reduces feeding in freshwater mussels». Sci. Total Environ., 598: 1160-1168. Vogel, S. (1994). Life in moving fluids: The physical biology of flow. Princeton: Princeton University Press.
Treballs de la Societat Catalana de Biologia, 70: 27-32
29/3/21 14:58
Com es defensen els organismes antàrtics marins? Armes químiques sota el gel Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler Departament de Biologia Evolutiva, Ecologia i Ciències Ambientals i Institut de Recerca de la Biodiversitat, Universitat de Barcelona Correspondència: Conxita Àvila. Departament de Biologia Evolutiva, Ecologia i Ciències Ambientals i Institut de Recerca de la Biodiversitat, Universitat de Barcelona. Av. Diagonal, 643. 08028 Barcelona. Adreça electrònica: conxita.avila@ub.edu.
DOI: 10.2436/20.1501.02.189 ISSN (ed. impresa): 0212-3037 ISSN (ed. digital): 2013-9802 http://revistes.iec.cat/index.php/TSCB Rebut: 11/02/2019 Acceptat: 20/01/2020
Resum Les regions polars estan patint les taxes d’escalfament més ràpides del planeta, la qual cosa provoca la pèrdua de gel marí i la retirada de les glaceres costaneres i les plataformes de gel. Les espècies marines bentòniques estan exposades a grans reptes a causa dels canvis ambientals: temperatures més altes, acidificació oceànica, augment de la radiació ultraviolada (UV), alteració dels nivells de gel marí, fregament dels icebergs als fons marins… Els productes naturals marins són principalment metabòlits secundaris que regulen la biologia, la convivència i coevolució de les espècies. Els productes naturals tenen un paper important en les interaccions entre depredadors i preses, però també en la simbiosi, la competència, l’antifouling (per evitar el creixement d’epibionts), la reproducció, l’assentament larval, etc. En aquest article revisem els resultats més recents en l’ecologia química de macroorganismes marins antàrtics, on s’han trobat nous productes naturals amb activitats diverses, com la repulsió, l’activitat antibacteriana, la citotoxicitat i altres, a partir d’organismes com algues, esponges, cnidaris, briozous, mol·luscs, equinoderms i tunicats. Conèixer com el canvi global pot estar afectant la producció de compostos naturals i com aquests canvis poden afectar la supervivència de les espècies és un tema de gran interès.
Paraules clau: invertebrats bentònics, macroalgues, productes naturals, ecologia química, bioactivitat.
How do Antarctic marine organisms defend themselves? Chemical weapons under the ice Summary Polar regions are suffering the fastest warming rates on our planet, causing a loss of sea ice and the retreat of coastal glaciers and ice shelves. Benthic marine species are exposed to major challenges due to environmental changes: higher temperatures, ocean acidification, increasing UV radiation, altered sea ice levels, iceberg scouring, etc. Marine natural products (mainly secondary metabolites) comprise for the most part secondary metabolites regulating the biology, coexistence and coevolution of species. Natural products play important roles in predator-prey interactions as well as in symbiosis, competition, antifouling (to prevent the growth of epibionts), reproduction, larval settlement, etc. We review here the most recent findings regarding the chemical ecology of Antarctic marine macroorganisms, including seaweeds, sponges, cnidarians, bryozoans, molluscs, echinoderms and tunicates, in which a number of new natural products with diverse properties, such as unpalatability, antibacterial activity, cytotoxicity and others, have been reported. How climate change may affect the production of natural compounds and species survival is a very interesting topic for future research.
Keywords: benthic invertebrates, macroalgae, natural products, chemical ecology, bioactivity.
Introducció Al llarg de les darreres dècades s’han descrit nombrosos productes naturals nous procedents d’organismes marins (Blunt et al., 2018, i anteriors revisions). Malgrat això, només se n’han investigat un grapat per la seva funció en el medi en què viuen aquests organismes, i això és especialment significatiu en ecosistemes antàrtics (Àvila et al., 2008; Núñez-Pons i Àvila 2015; Principe i Fisher, 2018, Puglisi et al., 2018 i revisions anteriors; Puglisi i Becerro, 2018). De fet, el paper ecològic dels compostos bioactius al medi marí és una de les qüestions encara més desconegudes d’aquests darrers anys. Fins ara, s’han trobat uns sis-cents productes naturals en organismes del bentos marí antàrtic (Lebar et al., 2007; Tian et al., 2017; Soldatou i Baker, 2017), però només d’uns pocs compostos (o extractes crus) en coneixem la funció ecològica (Àvila et al., 2008; McClintock et al.; 2010; Núñez-Pons i Àvila, 2015; Àvila,
2016a, Angulo-Preckler et al., 2018; NúñezPons et al., 2018; Salm et al., 2018). Els ecosistemes de l’oceà Antàrtic, tanmateix, contenen una enorme biodiversitat, molt més gran del que s’havia pensat anys enrere, amb moltes espècies críptiques que s’estan descrivint actualment i, per això, s’estima que la diversitat química serà també molt elevada (Wilson et al., 2013; Broyer et al., 2014, Àvila 2016a, b). El bentos marí de l’Antàrtida és, doncs, una font encara força desconeguda de productes naturals per descobrir. Els productes naturals marins comprenen principalment metabòlits secundaris que regulen la biologia, la coexistència i la coevolució de les espècies, sense participar directament en el seu metabolisme primari (és a dir, creixement, desenvolupament i reproducció; Torssel, 1983). Els productes naturals sovint tenen un paper important en les interaccions depredador- presa, però també en altres interaccions, com Treballs de la Societat Catalana de Biologia, 70: 33-38
Revista TSCB 70.indd 33
ara simbiosi, competència, antifouling (per evitar el creixement d’epibionts), reproducció, assentament larval, i altres (Amsler et al., 2001; Figuerola et al., 2012; Puglisi et al., 2018). Una de les funcions més estudiades dels compostos naturals en comunitats antàrtiques és l’activitat de repulsió contra la depredació. Així, s’han descrit moltes espècies químicament protegides en àrees com el mar de Ross, la península Antàrtica occidental, el mar de Weddell oriental i l’illa de Bouvet (Amsler et al., 2001, 2014; Àvila et al., 2008; McClintock et al., 2010; Taboada et al., 2013; Figuerola et al., 2013; Núñez-Pons i Àvila, 2014a, b). No resulta sorprenent que les zones més estudiades siguin les més properes a les estacions de recerca científica, mentre que encara queden grans àrees geogràfiques, més llunyanes, per investigar. Altres possibles activitats ecològiques de les molècules, conegudes a altres latituds, han estat de moment menys estudiades a l’Antàrtida.
33
29/3/21 14:58
Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler
Productes naturals Una característica dels metabòlits secundaris és la seva distribució filogenètica limitada; mentre que els metabòlits primaris com els aminoàcids comuns, els glúcids i els nucleòsids són químicament idèntics en pràcticament tots els organismes, els metabòlits secundaris, tant els més simples com els més complexos, solen limitar-se a una determinada espècie, gènere o família, o fins i tot s’han determinat quimiotips específics per a diferents espècies (Torssel, 1983; Blunt et al., 2018). Hi ha diverses classes de productes naturals, reconeguts segons el seu origen biosintètic, com els policètids, els terpens, i els alcaloides (Torssel, 1983). En aquest treball revisem breument els estudis químics sobre alguns grups seleccionats d’organismes bentònics de l’Antàrtida, en particular macroalgues, esponges, cnidaris, mol·luscs, i tunicats, tots ells actors molt rellevants en aquests ecosistemes, tant pel que fa a diversitat i abundància com pel que fa a biomassa (Broyer et al., 2014). Tot i que el nombre de metabòlits descrits a partir de macroalgues ha augmentat des de mitjans del segle xx, la proporció d’espècies d’algues antàrtiques estudiades en aquest camp és encara menor que en altres àrees geogràfiques (Wiencke i Clayton, 2002; Wiencke et al., 2014; Salm et al., 2018). Les macroalgues antàrtiques posseeixen una diversitat relativament gran de molècules amb diferents funcions (vegeu la figura 1 i la taula 1), que són ecològicament importants perquè són actors clau en els sistemes costaners antàrtics ja que estructuren les seves comunitats (Wiencke i Clayton, 2002; Wiencke et al., 2014). Una part important dels metabòlits descrits a partir d’algues són els compostos halogenats, però cada grup (Rhodophyta, Chlorophyta i Ochrophyta) tendeix a
produir els seus propis metabòlits únics. La majoria dels compostos són isoprenoides (terpens, carotenoides, cistones, meroterpenoides, cistodiones i esteroides), però els policètids i els shikimats (principalment productes aromàtics com quinones, hidroquinones prenilades i tanins) també són abundants (Young et al., 2007; Blunt et al., 2018). Fins ara, només s’han descrit disset tàxons d’algues verdes antàrtiques (cloròfits; Wiencke i Clayton, 2002; Amsler i Fairhead, 2006; Wiencke et al., 2014). La majoria de les molècules descrites a partir de cloròfits són terpenoides, però contràriament a altres grups d’algues, com les algues vermelles, en aquest cas no tenen un alt nivell d’halogenació (Blunt et al., 2007; Young et al., 2015; Amsler et al., 2008; Salm et al., 2018; Blunt et al., 2018). La majoria de macroalgues produeixen compostos orgànics volàtils halogenats (VHO) (Laturnus et al., 1996), i també alguns pigments protectors dels raigs UV (UVR; Núñez-Pons et al., 2018). Els compostos produïts pels ocròfits de l’Antàrtida inclouen principalment florotanins (polifenols), i també diterpens i acetogenines (Blunt el al., 2007; Amsler et al., 2008; Salm et al., 2018). Les algues vermelles (aproximadament vuitanta espècies) són el grup més divers de macroalgues a les comunitats antàrtiques, tant en nombre d’espècies com en metabòlits descrits, i posseeixen una gran varietat d’estructures químiques (Wiencke i Clayton, 2002; Amsler i Fairhead, 2006; Amsler et al., 2008; Wiencke et al., 2014). Cal destacar que, en contrast amb les algues brunes, no presenten florotanins (Blunt et al., 2018; Núñez-Pons et al., 2018). Les esponges són components dominants del bentos antàrtic i tenen un paper important en l’estructura i la dinàmica de les comunitats bentòniques (Dayton et al., 1974; McClintock,
1987; Dayton et al., 1989). Fins ara s’han investigat químicament setze espècies d’esponges antàrtiques, pertanyents a catorze gèneres (Àvila et al., 2008). Es van aïllar diversos tipus estructurals i nous metabòlits dels gèneres Latrunculia (Ford i Capon, 2000; Furrow et al., 2003; Li et al., 2018), Isodictya (Moon et al., 2000; Vankayala et al., 2017), Crella (Ma et al., 2009), i diverses esponges hexactinèl·lides (Núñez-Pons et al., 2012a, Carbone et al., 2014), entre d’altres (vegeu la figura 1). Els derivats de suberitans del gènere d’esponja Suberites han estat proposats com a compostos amb rellevància taxonòmica (Díaz-Marrero et al., 2003, 2004). Tanmateix, en un estudi recent, es van trobar anàlegs molt propers d’una altra esponja antàrtica, Phorbas areolatus (Solanki et al., 2018), la qual cosa indica que encara cal estudiar amb més detall aquest aspectes abans d’emprar-los per a la identificació de les espècies. D’altra banda, l’origen dels compostos en porífers podria tenir relació també amb els microorganismes simbionts d’aquestes esponges (Papaleo et al., 2012), tot i que això està encara molt poc estudiat. Els coralls tous són organismes sèssils, sovint sense defenses físiques o de comportament. Això ha conduït a un gran desenvolupament de les seves defenses químiques. Així, la gran majoria de productes naturals descrits a cnidaris són del grup dels Anthozoa (animals flor), la més gran de les quatre classes de cnidaris, i particularment d’Octocorallia, amb més del 80 % dels compostos identificats (Harper et al., 2001; Blunt et al., 2018). Aquí, els típics productes químics defensius són terpenoides i esteroides (Paul, 1992; Salm et al., 2014, i revisats a NúñezPons i Àvila 2015), encara que també poden incloure toxines potents (Slattery i McClintock, 1995; Jouiaei et al., 2015). En els últims anys,
Figura 1. a) Nombre total d’espècies antàrtiques descrites per fílum (Broyer et al., 2014). b) Percentatge d’espècies on s’han descrit productes naturals entre els anys 2000 i 2018 respecte al nombre total d’espècies antàrtiques per fílum (segons dades de la revisió d’Angulo-Preckler et al., 2020b).
34
Revista TSCB 70.indd 34
Treballs de la Societat Catalana de Biologia, 70: 33-38
29/3/21 14:58
Com es defensen els organismes antàrtics marins? Armes químiques sota el gel
Taula 1. Activitat ecològica de les molècules aïllades de macroorganismes bentònics marins antàrtics (per fílum) des de l’any 2000 fins a l’any 2018 (d’acord amb la revisió d’Angulo-Preckler et al., 2020b) Bioactivitat Filum
Repulsió Macrodepredador
Microdepredador
Activitat antimicrobiana
Citotoxicitat *
Ochrophyta
*
*
*
Rhodophyta
*
*
*
Porifera
*
*
*
Cnidaria
*
Mollusca
*
Echinodermata Tunicata
Anticongelant
Inhibidor de creixement
*
*
*
* *
*
*
* *
els de zones profundes (fins a centenars de metres de fondària), presenten productes naturals bioactius d’estructura diversa, com ara el palmerolide A, diferents ecdisteroides, meridianines, aplicianines i rossinones (Diyabalanage et al., 2006; Miyata et al., 2007; Seldes et al., 2007; Appleton et al., 2009). Sovint no està clar si els tunicats són els veritables productors de les molècules o si els microorganismes associats poden jugar un paper en la seva ecologia química (Núñez-Pons et al., 2012b). Els productes naturals de mol·luscs antàrtics han estat revisats recentment per Àvila et al. (2018). Molt pocs estudis nous han investigat altres grups d’organismes, com ara els equinoderms o altres grups menors (vegeu la figura 1). En general, els metabòlits secundaris dels organismes marins antàrtics són crítics per a l’estructuració de comunitats bentòniques marines i la supervivència de les espècies que hi viuen (Àvila et al., 2008, Figuerola et al., 2012, Salm et al., 2018). Els productes naturals marins mostren esquelets de carboni i grups funcionals únics a la natura, entre els quals els terpenoides, les acetogenines i els compostos de biosíntesi mixta són les principals classes de compostos que podem trobar. El nombre total de macroorganismes bentònics antàrtics estudiats químicament entre 2000 i 2018 va ser de cinquanta-quatre espècies, de les quals onze eren macroalgues (sis Ochrophyta i cinc Rhodophyta), setze Porifera, deu Cnidaria, tres Mollusca, una Bryozoa, cinc Echinodermata i vuit Tunicata (vegeu la figura 1). El nombre i la diversitat de productes naturals que es troben a mesura que anem estudiant els organismes antàrtics va augmentant ràpidament, i cal que ens plantegem, doncs, la següent pregunta: com funcionen aquests compostos a la natura?
Ecologia química Les regions polars són més difícils d’estudiar que altres zones del planeta degut a les dificulTreballs de la Societat Catalana de Biologia, 70: 33-38
Revista TSCB 70.indd 35
Al·leopàtic
* *
s’han aïllat dels octocorals de l’Antàrtida diferents productes naturals nous, principalment terpenoides. S’ha trobat que Alcyonium antarcticum (A. paessleri) posseeix diversos terpenoides, incloent les paesslerines A i B (Rodriguez Brasco et al., 2001), les alciopterosines (Palermo et al., 2000; Carbone et al., 2009), l’alcionicè i el deacetoxialcionicè, i alguns altres sesqui terpens (Manzo et al., 2009). Les alciopterosines són sesquiterpenoides d’iludalans, també descrites per a altres espècies del mateix gènere, com A. grandis, A. haddoni, A. paucilobulatum i A. roseum (Núñez-Pons i Àvila, 2015). La gorgònia antàrtica Dasystenella acanthina també presenta sesquiterpens (Gavagnin et al., 2003). A més dels terpenoides, també s’han descrit nous esteroides a l’espècie Anthomastus ba thyproctus (Mellado et al., 2005). Els tunicats (cordats) són animals exclusivament marins, majoritàriament sèssils en l’etapa adulta, i protegits per una túnica més o menys resistent. Al llarg de l’evolució han des envolupat una gran varietat de mecanismes defensius per evitar la depredació i el fouling, com ara la protecció física, però sobretot les defenses químiques. Aquestes comprenen l’acumulació de metalls pesants o àcids als seus teixits, i l’ús de compostos bioactius (NúñezPons et al., 2012b). Existeixen diferents estratègies, mentre que els ascidis colonials tendeixen a produir compostos antifouling i repel·lents, alguns individus solitaris tendeixen a recobrir-se d’epibionts per ocultar-se dels possibles depredadors mitjançant la cripsi (Stoecker, 1980; Lambert, 2005). Els ascidis majoritàriament contenen compostos nitrogenats, particularment heterocicles aromàtics, com pèptids, alcaloides i metabòlits derivats d’aminoàcids (Blunt et al., 2018). A més, en quantitats més petites, presenten alguns compostos no nitrogenats, com lactones, terpenoides o quinones (Blunt et al., 2018). Els tunicats antàrtics, tant els de fons poc profunds com
Antifouling
*
tats per accedir-hi i, per tant, el progrés científic en elles ha estat comparativament més lent. Tanmateix, es pot esperar que els ambients marins extrems i sovint únics que envolten l’Antàrtida, així com les moltes interaccions tròfiques inusuals que trobem a les comunitats marines antàrtiques, afavoreixin el desenvolupament de nous productes naturals i noves funcions biològiques (Amsler et al., 2001; Àvila et al., 2008). S’han descrit diversos metabòlits secundaris nous amb activitats diverses (vegeu la taula 1), com ara repulsió enfront de depredadors, antibacterians, citotòxics i altres, en organismes antàrtics en els anys 2000 a 2018, principalment de macroalgues, esponges, cnidaris, briozous, mol·luscs, equinoderms, tunicats, microorganismes i simbionts, com per exemple microbis associats a esponges (Papaleo et al., 2012, Núñez-Pons et al., 2012c; Núñez-Pons i Àvila, 2015; Salm et al., 2018). En molts casos, no està encara clar si els compostos es produeixen a través de biosíntesi de novo al mateix organisme, o si s’adquireixen a través de la dieta, o bé si procedeixen de simbionts microbians (Àvila et al., 2008, Salm et al., 2018). Els compostos aïllats a partir de macroalgues antàrtiques són escassos, però els extractes químics de macroalgues han mostrat diverses activitats destacables, incloent repulsió davant d’herbívors, antibiòtics, i protecció enfront dels raigs UV (McClintock i Karentz, 1997; Schnitzler et al., 2001; Amsler et al., 2005; Fairhead et al., 2005; Erickson et al., 2006; Rhimou et al., 2010; Figuerola et al., 2012). S’ha publicat recentment una revisió específica sobre els compostos que protegeixen els organismes antàrtics dels raigs UV (Núñez-Pons et al., 2018). S’ha descrit també repulsió d’extractes i teixits d’algunes espècies d’algues brunes contra herbívors simpàtrics (Ankisetty et al., 2004; Amsler et al., 2005, 2008, 2009, 2014; Huang et al., 2006), com en el gènere Desmarestia (D. antarctica, D. anceps i D. menziesii), així com
35
29/3/21 14:58
Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler
en Himantothallus grandifolius, Cystosphaera jacquinotii i Ascoseira mirabilis. Les algues brunes són molt importants a l’Antàrtida en termes de biomassa, així com en diversitat d’espècies (aproximadament vint-i-set espècies) i grau d’endemisme (dotze espècies) (Wiencke i Clayton, 2002; Amsler i Fairhead, 2006; Wiencke et al. 2014). Per tant, aquest grup i les seves interaccions químiques són un component molt destacable de les comunitats bentòniques antàrtiques (Amsler et al., 2009). A més, s’ha descrit un exemple interessant de bioactivitat a D. menziesii en què les plastoquinones actuen contra els herbívors, afecten la fertilitat dels eriçons de mar, repel·leixen les estrelles de mar i eviten la proliferació d’alguns bacteris (Rivera, 1996; Ankisetty et al., 2004). Alguns exemples de molècules altament actives d’algues vermelles són les furanones halogenades, com ara la pulcralida, el fimbrolide, l’acetoxifimbrolide i l’hidroxifimbrolide, aquests dos últims amb una forta activitat antimicrobiana (Ankisetty et al., 2004). Una de les algues vermelles més conegudes de l’Antàrtida és Plocamium cartilagineum, que mostra una gran varietat de productes naturals, tant per dissuadir els depredadors com per controlar la proliferació microbiana, com ara epiplocamè, piranoides, i monoterpens halogenats cíclics i acíclics (Fries, 2016; Salm et al., 2018). Com s’ha esmentat abans, els exemples de relacions ecològiques rellevants controlades mitjançant productes naturals inclouen substàncies repel·lents d’una gamma de macroalgues antàrtiques (Amsler et al., 2005; Aumack et al., 2010) i molècules defensives de diversos invertebrats, com ara les esponges Latrunculia apicalis (Furrow et al., 2003), Rossella spp. (Núñez-Pons et al., 2012a), Phorbas areolatus (Solanki et al., 2018), i altres esponges antàrtiques (Peters et al., 2009; Núñez-Pons et al., 2012a, Angulo-Preckler et al., 2018); els cnidaris Alcyonium spp. (Carbone et al., 2009; Núñez-Pons et al., 2013), i altres tres coralls tous (Slattery i McClintock, 1995); el braquiòpode Liothyrella uva (McClintock et al., 1993; Mahon et al., 2003); els mol·luscs nudibranquis Bathydoris hodgsoni (Àvila et al., 2000), i Doris kerguelenensis (Iken et al. 2002); els ascidis Distaplia cylindrica (McClintock et al., 2004), Cnemidocarpa verrucosa (McClintock et al., 1991), Aplidium spp., Synoicum spp. (Núñez-Pons et al., 2010, 2012b), i altres ascidis (Koplovitz et al., 2009), així com ous, embrions i larves d’una varietat d’espècies d’invertebrats (McClintock i Baker, 1997; Moles et al., 2017). A més, en diversos estudis amb dife-
36
Revista TSCB 70.indd 36
rents espècies, es va trobar que moltes contenien fraccions lipòfiles que repel·lien l’estrella de mar Odontaster validus i l’amfípode Cheirimedon femoratus, macro- i microdepredadors, respectivament (Taboada et al., 2013; NúñezPons i Àvila, 2014b; Moles et al., 2015). Un estudi més recent amb vint esponges antàrtiques va avaluar la repulsió contra l’estrella de mar i l’activitat antimicrobiana contra bacteris simpàtrics, i va revelar una sorprenent activitat antimicrobiana (100 %) i de repulsió (22 %) (Angulo-Preckler et al., 2018). L’activitat ecològica de les molècules dels mol·luscs també ha estat revisada recentment (Àvila et al., 2018). Algunes alciopterosines són repel·lents contra l’estrella de mar omnívora Odontaster validus (Carbone et al., 2009). No s’ha descrit
cap activitat ecològica per a la resta de productes naturals d’Alcyonium spp., excepte pel que fa a la moderada citotoxicitat de les paessle rines A i B (Rodriguez Brasco et al., 2001). L’ainigmaptilona A, aïllada de la gorgònia Ainigmaptilon antarcticus, també mostrava repulsió contra O. validus, juntament amb propietats antifouling, mentre que l’ainigmaptilona B no va mostrar cap d’aquestes activitats (Iken i Baker, 2003). Els pigments i els derivats pigmentaris també es poden utilitzar amb finalitats defensives. Dos sesquiterpenoides d’Acan thogorgia laxa presenten activitat antifouling contra una àmplia gamma de microorganismes (Patiño Cano et al., 2018). A més, els set esteroides de l’octocoral Anthomastus ba thyproctus presenten una lleugera citotoxicitat
A 3
1
2
B 8 7 4
5 6
Figura 2. Comunitats bentòniques antàrtiques fotografiades a poca fondària a les illes Shetland del Sud (Antàrtida). a) Associacions típiques d’invertebrats sèssils sobre substrats rocosos a l’illa Decepció (16 m de fondària). Dues esponges massives, Mycale (Oxymycale) acerata (1) i Axinella crinita (2), i l’estrella de mar Odontaster validus (3), envoltades de tentacles de poliquets terebèl·lids. Fotografia: Conxita Àvila. b) Fauna vàgil: les estrelles de mar Odontaster validus (4), Diplasterias sp. (5) i Granaster nutrix (6) alimentant-se del mol·lusc patèl·lid Nacella concinna (7), i juvenils de l’alga vermella Palmaria decipiens (8) a l’illa Livingston (18 m de fondària). Fotografia: Guillem Molina.
Treballs de la Societat Catalana de Biologia, 70: 33-38
29/3/21 14:58
Com es defensen els organismes antàrtics marins? Armes químiques sota el gel
(Mellado et al., 2005). Tot i que encara no s’han identificat els seus compostos, els extractes de moltes altres espècies de cnidaris han demostrat ser també repel·lents per a O. validus (Àvila, 2016a). Cal realitzar més estudis químics en el futur per identificar els productes naturals que hi ha darrere d’aquestes activitats ecològiques, que regulen les interaccions en els complexos sistemes antàrtics (vegeu la figura 2). Cal destacar que s’ha observat in situ una forta activitat antifouling per a diferents espècies antàrtiques, com ara l’hidroïdeu Eudendrium sp., les esponges Phorbas glaberrima i una Hadromerida no identificada, i el tunicat Synoicum adareanum (Angulo-Preckler et al., 2015). Recentment, a més, s’ha descrit que els extractes de Mycale tylotornota (esponja) i Cornucopina pectogemma (briozou) eviten in situ el fouling per part d’organismes eucariotes al mar (Angulo-Peckler et al., 2020a), la qual cosa demostra que els invertebrats també poden modular l’adhesió de les diferents comunitats microbianes, ja sigui mitjançant productes naturals del mateix invertebrat o bé mitjançant productes naturals produïts per la comunitat microbiana, de manera que s’obtenen diferents nivells de fouling. Tot i que la funció ecològica de molts metabòlits de tunicats continua sent desconeguda, se sap que almenys alguns d’ells s’utilitzen com a repel·lents per a depredadors (NúñezPons et al., 2010) i també com a compostos
antifouling (Davis i Bremner, 1999). La majoria dels compostos provenen dels gèneres Aplidium i Synoicum. També s’ha descrit citotoxicitat en aplicianines, rossinones i palmerolide A, mentre que s’ha descrit repulsió per a meridianines, rossinones i ecdisteroides (Angulo-Preckler et al., 2020b). En general, la majoria dels estudis amb organismes bentònics continuen considerant la repulsió contra herbívors i depredadors com a principal assaig ecològic, encara que en els últims anys s’observa un nombre creixent d’estudis que amplien el seu abast a diferents papers ecològics, com la inhibició antimicrobiana i els efectes citotòxics, per exemple (vegeu la taula 1).
L’Antàrtida juga un paper molt important en el sistema de regulació del clima terrestre, i el coneixement sobre els seus ecosistemes és vital per entendre i predir escenaris futurs. Des d’aquesta perspectiva, la informació sobre com els organismes antàrtics es relacionen entre sí a través dels productes naturals és clau per avançar en la nostra comprensió d’un món climàticament canviant, tot i que encara no tenim dades suficients, tal com s’ha vist en aquest treball. La capacitat de respondre fisiològicament a l’estrès per temperatura ha estat estudiada en molts taxons antàrtics diferents durant molts anys (revisada per Peck, 2018).
Els resultats han mostrat en general poca capacitat de supervivència, però sembla que hi ha alguna variació a nivell d’espècie (Ashton et al., 2017). Pel que fa als productes naturals, encara no sabem si els canvis de temperatura, acidificació, calcificació i altres poden afectar la producció i ús dels compostos naturals a l’Antàrtida. Els metabòlits relacionats amb la repulsió, com ara els monoterpens halogenats (com l’anverè i l’epiplocamè) que defineixen relacions entre macroalgues i herbívors simpàtrics, poden variar segons les condicions ambientals i, per tant, les relacions tròfiques en els ecosistemes antàrtics podrien veure’s fortament afectades pel canvi climàtic. Així mateix, la macroalga Desmarestia menziesii, per exemple, augmenta la producció de florotanins quan s’exposa a l’acidificació (Schoenrock et al., 2015). Tot i que s’han produït molts avenços recentment en l’estudi del paper ecològic dels productes naturals en el bentos marí antàrtic, encara queda molt per fer per tal d’aclarir el possible ús dels productes naturals per part dels organismes polars. Tant la biodiversitat com la diversitat química d’aquestes extraordinàries comunitats (vegeu la figura 2) poden veure’s greument afectades pel canvi global. Entre altres prioritats, és essencial que s’estudiï la producció dels compostos en relació amb el canvi climàtic i com aquest pot afectar la supervivència de les espècies, abans que sigui massa tard.
—
—
Perspectives de futur
Bibliografia Amsler, C. D. [et al.] (2001). «Secondary metabolites from Antarctic marine organisms and their ecological implications». A: McClintock, J. B.; Baker, B. J. (ed.). Marine chemical ecology. Boca Raton: C.R.C. Press, 267-300. — (2005). «Comprehensive evaluation of the palatability and chemical defenses of subtidal macroalgae from the Antarctic Peninsula». Mar. Ecol. Prog. Ser., 294: 141-159. — (2008). «Macroalgal chemical defenses in polar marine communities». A: Amsler, C. D. (ed.). Algal chemical ecology. Berlin: Springer-Verlag, 91-103. — (2009). «Defenses of polar macroalgae against herbivores and biofoulers». Bot. Mar., 52: 535-545. — (2014). «Chemical mediation of mutualistic interactions between macroalgae and mesograzers structure unique coastal communities along the western Antarctic Peninsula». J. Phycol., 50: 1-10. Amsler, C. D.; Fairhead V. A. (2005). «Defensive and sensory chemical ecology of brown algae». Adv. Bot. Res., 43: 1-91. Angulo-Preckler, C. [et al.] (2015). «Antifouling activity in some benthic Antarctic invertebrates by “in situ” experiments at Deception Island, Antarctica». Mar. Environ. Res., 105: 30-38. — (2018). «Antibacterial defenses and palatability of shallow-water Antarctic sponges». Hydrobiologia, 806: 123-128. — (2020a). «Chemical control of marine associated microbial communities in sessile Antarctic invertebrates. Aquatic Microbial Ecology, 85: 197-210. DOI: https://doi.org/10.3354/ame01948.
(2020b). «Chemical ecology in the Southern Ocean». A: Di Prisco, G. [et al.] (ed.). Life in extreme environments: Insights in biological capability. Cambridge: Cambridge University Press., 251-278. Ankisetty, S. [et al.] (2004). «Chemical investigation of predator-deterred macroalgae from the Antarctic Peninsula». J. Nat. Prod., 67: 1295-1302. Appleton, D. R. [et al.] (2009). «Rossinones A and B, biologically active meroterpenoids from the Antarctic Ascidian, Aplidium species». J. Org. Chem., 74: 9195-9198. Ashton, G. [et al.] (2017). «Warming by 1°C drives species and assemblage level responses in Antarctica’s marine shallows». Curr. Biol., 27: 2698-2705. Aumack, C. F. [et al.] (2010). «Chemically mediated resis tance to meso-herbivory in finely branched macroalgae along the western Antarctic Peninsula». Eur. J. Phycol., 45: 19-26. Àvila, C. (2016a). «Ecological and pharmacological activities of Antarctic marine natural products». Planta Med., 82: 767-774. — (2016b). «Biological and chemical diversity in Antarctica: From new species to new natural products». Biodivers., 17: 5-11. Àvila, C. [et al.] (2000). «Chemical ecology of the Antarctic nudibranch Bathydoris hodgsoni Eliot, 1907: Defensive role and origin of its natural products». J. Exp. Mar. Biol. Ecol., 252: 27-44. — (2008). «Antarctic marine chemical ecology: What is next?». Mar. Ecol., 29: 1-71. Blunt, J. W. [et al.] (2007). «Marine natural products». Nat. Prod. Rep., 24: 31-86.
Treballs de la Societat Catalana de Biologia, 70: 33-38
Revista TSCB 70.indd 37
(2018). «Marine natural products». Nat. Prod. Rep., 35: 8-53. Broyer, C. de [et al.] (2014). Biogeographic atlas of the Southern Ocean. Cambridge: Scientific Committee on Antarctic Research. Carbone, M. [et al.] (2009). «Illudalene sesquiterpenoids of the alcyopterosin series from the Antarctic marine soft-coral Alcyonium grandis». J. Nat. Prod., 72: 13571360. — (2014). «Occurrence of a taurine derivative in an Antarctic glass sponge». Nat. Prod. Comm., 9: 469470. Davis, A. R.; Bremner, J. B. (1999). «Potential antifouling natural products from ascidians: A review». A: Fingerman, M. [et al.] (ed.). Recent advances in marine biotechnology. Vol. III. New Hampshire: Science Publishers, 259-308. Dayton, P. K. (1989). «Interdecadal variation in an Antarctic sponge and its predators from oceanographic climate shifts». Science, 245: 1484-1486. Dayton, P. K. [et al.] (1974). «Biological accommodation in the benthic community at McMurdo Sound, Antarctica». Ecol. Monogr., 44: 105-128. Díaz-Marrero, A. R. [et al.] (2003). «Caminatal, an aldehyde sesterterpene with a novel carbon skeleton from the Antarctic sponge Suberites caminatus». Tetrahedron Lett., 44: 5939-5942. — (2004). «Suberitane network, a taxonomical marker for Antarctic sponges of the genus Suberites? Novel sesterterpenes from Suberites caminatus». Tetrahedron Lett., 45: 4707-4710.
37
29/3/21 14:58
Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler
Diyabalanage, T. [et al.] (2006). «Palmerolide A, a cytotoxic macrolide from the Antarctic tunicate Synoicum adareanum». J. Am. Chem. Soc., 128: 5630- 5631. Erickson, A. A. [et al.] (2006). «Palatability of macroalgae that use different types of chemical defenses». J. Chem. Ecol., 32: 1883-1895. Fairhead, V. A. [et al.] (2005). «Within-thallus variation in chemical and physical defenses in two species of ecologically dominant brown macroalgae from the Antarctic Peninsula». J. Exp. Mar. Biol. Ecol., 322: 1-12. Figuerola, B. [et al.] (2012). «Chemical interactions in Antarctic marine benthic ecosystems». A: Cruzado A. (ed.). Marine ecosystems. Rijeka: InTech, 105-126. — (2013). «Feeding repellence in Antarctic bryozoans». Naturwissenschaften, 100: 1069-1081. Ford, J.; Capon, R. J. (2000). «Discorhabdin R: A new antibacterial pyrroloiminoquinone from two latrunculiid marine sponges, Latrunculia sp. and Negombata sp.». J. Nat. Prod., 63: 1527-1528. Fries, J. L. (2016). Chemical investigation of Antarctic marine organisms and their role in modern drug discovery. Tampa: University of South Florida. Furrow, F. B. [et al.] (2003). «Surface sequestration of chemical feeding deterrents in the Antarctic sponge Latrunculia apicalis as an optimal defense against sea star spongivory». Mar. Biol., 143: 443-449. Gavagnin, M. [et al.] (2003). «Austrodoral and austrodoric acid: Nor-sesquiterpenes with a new carbon skeleton from the Antarctic nudibranch Austrodoris kerguelenensis». Tetrahedron Lett., 44: 1495-1498. Harper, M. K. [et al.] (2001). «Introduction to the chemical ecology of marine natural products». A: McClintock J. B.; Baker B. J. (ed.). Marine chemical ecology. Boca Raton: CRC Press, 3-69. Huang, Y. M. [et al.] (2006). «Feeding rates of common Antarctic gammarid amphipod on ecologically important sympatric macroalgae». J. Exp. Mar. Biol. Ecol., 329: 55-65. Iken, K. [et al.] (2002). «Chemical ecology and origin of defensive compounds in the Antarctic nudibranch Austrodoris kerguelenensis (Opisthobranchia: Gastropoda)». Mar. Biol., 141: 101-109. Iken, K. B.; Baker, B. J. (2003). «Ainigmaptilones, sesqui terpenes from the Antarctic gorgonian coral Ainigmaptilon antarcticus». J. Nat. Prod., 66: 888-890. Jouiaei, M. [et al.] (2015). «Ancient venom systems: A review on cnidaria toxins». Toxins, 7: 2251-2271. Koplovitz, G. [et al.] (2009). «Palatability and chemical anti-predatory defenses in common ascidians from the Antarctic Peninsula». Aquat. Biol., 7: 81-92. Lambert, G. (2005). «Ecology and natural history of the protochordates». Can. J. Zool., 83: 34-50. Laturnus, F. [et al.] (1996). «Antarctic macroalgae – Sources of volatile halogenated organic compounds». Mar. Environ. Res., 41: 169-181. Lebar, M. D. [et al.] (2007). «Cold-water marine natural products». Nat. Prod. Rep., 24: 774-797. Li, F. [et al.] (2018). «Targeted isolation of tsitsikammamines from the Antarctic deep-sea sponge Latrunculia biformis by molecular networking and anticancer activity». Mar. Drugs, 16: 268. Ma, W. S. [et al.] (2009). «Norselic acids A-E, highly oxidized anti-infective steroids that deter mesograzer predation, from the Antarctic sponge Crella sp.». J. Nat. Prod., 72: 1842-1846. Mahon, A. R. [et al.] (2003). «Tissue-specific palatability and chemical defenses against macropredators and pathogens in the common articulate brachiopod Liothyrella uva from the Antarctic Peninsula». J. Exp. Mar. Biol. Ecol., 290: 197-210. Manzo, E. [et al.] (2009). «Terpenoid content of the Antarctic soft coral Alcyonium antarcticum». Nat. Prod. Commun., 4: 1615-1619. McClintock, J. B. (1987). «Investigation of the relationship between invertebrate predation and biochemical composition, energy content, spicule armament and toxicity of benthic sponges at McMurdo Sound, Antarctica». Mar. Biol., 94: 479-487. McClintock, J. B. [et al.] (1991). «Biochemical and energetic composition, population biology, and chemical defense of the Antarctic ascidian Cnemidocarpa verrucosa lesson». J. Exp. Mar. Biol. Ecol., 147: 163-175.
38
Revista TSCB 70.indd 38
—
(1993). «Energy content and chemical defense of the articulate brachiopod Liothyrella uva (Jackson, 1912) from the Antarctic Peninsula». J. Exp. Mar. Biol. Ecol., 169: 103-116. — (2004). «Biochemical composition, energy content and chemical antifeedant and antifoulant defenses of the colonial Antarctic ascidian Distaplia cylindrica». Mar. Biol., 145: 885-894. — (2010). «Overview of the chemical ecology of benthic marine invertebrates along the western Antarctic Peninsula». Integr. Comp. Biol., 50: 967-980. McClintock, J. B.; Baker, B. J. (1997). «Palatability and chemical defense of eggs, embryos and larvae of shallow water Antarctic marine invertebrates». Mar. Ecol. Prog. Ser., 154: 121-131. McClintock, J. B.; Karentz, D. (1997). «Mycosporine-like amino acids in 38 species of subtidal marine organisms from McMurdo Sound. Antarctica». Antarct. Sci., 9: 392-398. Mellado, G. G. [et al.] (2005). «Steroids from the Antarctic octocoral Anthomastus bathyproctus». J. Nat. Prod., 68: 1111-1115. Miyata, Y. [et al.] (2007). «Ecdysteroids from the Antarctic Tunicate Synoicum adareanum». J. Nat. Prod., 70: 1859-1864. Moles, J. [et al.] (2015). «Anti-predatory chemical defences in Antarctic benthic fauna». Mar. Biol., 162: 18131821. — (2017). «Giant embryos and hatchlings of Antarctic nudibranchs (Mollusca: Gastropoda: Heterobranchia)». Mar. Biol., 164, núm. art. 114. Moon, B. [et al.] (2000). «Structure and bioactivity of erebusinone, a pigment from the Antarctic sponge Isodictya erinacea». Tetrahedron, 56: 9057-9062. Núñez-Pons, L. [et al.] (2010). «Chemical defenses of tunicates of the genus Aplidium from the Weddell Sea (Antarctica)». Polar Biol., 33: 1319-1329. — (2012a). «Chemo-ecological studies on hexactinellid sponges from the Southern Ocean». Naturwissenschaften, 99: 353-368. — (2012b). «Natural products from Antarctic colonial ascidians of the genera Aplidium and Synoicum: Variability and defensive role». Mar. Drugs, 10: 1741-1764. — (2012c). «Feeding deterrency in Antarctic marine organisms: Bioassays with the omnivore amphipod Cheirimedon femoratus». Mar. Ecol. Prog. Ser., 462: 163-174. — (2013). «Lipophilic defenses from Alcyonium soft corals of Antarctica». J. Chem. Ecol., 39: 675-685. — (2018). «UV-protective compounds in marine organisms from the Southern Ocean». Mar. Drugs, 16: 336. Núñez-Pons, L.; Àvila, C. (2014a). «Defensive metabolites from Antarctic invertebrates: Does energetic content interfere with feeding repellence?». Mar. Drugs, 12: 3770-3791. — (2014b). «Deterrent activities in the crude lipophilic fractions of Antarctic benthic organisms: Chemical defences against keystone predators». Polar Res., 33: 21624. — (2015). «Natural products mediating ecological interactions in Antarctic benthic communities: A mini-review of the known molecules». Nat. Prod. Rep., 32: 1114-1130. Palermo, J. A. [et al.] (2000). «Illudalane sesquiterpenoids from the soft coral Alcyonium paessleri: The first natural nitrate esters». J. Org. Chem., 65: 4482-4486. Papaleo, M. C. [et al.] (2012). «Sponge-associated microbial Antarctic communities exhibiting antimicrobial activity against Burkholderia cepacia complex bacteria». Biotechnol. Adv., 30: 272-293. Patiño Cano, L. P. [et al.] (2018). «Isolation and antifouling activity of azulene derivatives from the Antarctic gorgonian Acanthogorgia laxa». Chem. Biodivers., 15: e1700425. Paul, V. J. (1992). Ecological roles of marine natural products. Nova York: Comstock Pub. Associates. Peck, L. S. (2018). «Antarctic marine biodiversity: Adaptations, environments and responses to change». Oceanogr. Mar. Biol., 56: 105-236. Peters, K. J. [et al.] (2009). «Palatability and chemical defenses of sponges from the western Antarctic Peninsula». Mar. Ecol. Prog. Ser., 385: 77-85.
Principe, P. P.; Fisher, W. S. (2018). «Spatial distribution of collections yielding marine natural products». J. Nat. Prod., 81: 2307-2320. Puglisi, M. P. [et al.] (2019). «Marine chemical ecology in benthic environments». Nat. Prod. Rep., 36: 410429. Puglisi, M. P.; Becerro, M. A. (ed.) (2018). Chemical ecology: the ecological impacts of marine natural products. Boca Raton: CRC Press. Rhimou, B. [et al.] (2010). «Antiviral activity of the extracts of Rhodophyceae from Morocco». Afr. J. Biotechnol., 9: 7968-7975. Rivera, P. (1996). «Plastoquinones and a chromene isolated from the Antarctic brown alga Desmarestia menziesii». Bol. Soc. Chil. Quim., 41: 103-105. Rodriguez Brasco, M. F. [et al.] (2001). «Paesslerins A and B: Novel tricyclic sesquiterpenoids from the soft coral Alcyonium paessleri». Org. Lett., 3: 14151417. Salm, J. L. von [et al.] (2014). «Shagenes A and B, new tricyclic sesquiterpenes produced by an undescribed Antarctic octocoral». Org. Lett., 16: 2630-2633. — (2018). «The status of marine chemical ecology in Antarctica. Form and function of unique high-latitude chemistry». A: Puglisi, M. P.; Becerro M. A. (ed.). Chemical ecology: The ecological impacts of marine natural products, 27-69. Boca Raton: CRC Press. Schnitzler, I. [et al.] (2001). «Chemical defense of brown algae (Dictyopteris spp.) against the herbivorous amphipod Ampithoe longimana». Oecologia, 126: 515521. Schoenrock, K. M. [et al.] (2015). «Climate change impacts on overstory Desmarestia spp. from the western Antarctic Peninsula». Mar. Biol., 162: 377-389. Seldes, A. M. [et al.] (2007). «Identification of two meridianins from the crude extract of the tunicate Aplidium meridianum by tandem mass spectrometry». Nat. Prod. Res., 21: 555-563. Slattery, M.; McClintock, J. B. (1995). «Population structure and feeding deterrence in three shallow-water Antarctic soft corals». Mar. Biol., 122: 461-470. Solanki, H. [et al.] (2018). «Suberitane sesterterpenoids from the Antarctic sponge Phorbas areolatus (Thiele, 1905)». Tetrahedron Lett., 59: 3353-3356. Soldatou, S.; Baker, B. J. (2017). «Cold-water marine natural products, 2006 to 2016». Nat. Prod. Rep., 34: 585-626. Stoecker, D. (1980). «Chemical defenses of ascidians against predators». Ecology, 61: 1327-1334. Taboada, S. [et al.] (2013). «Feeding repellence of Antarctic and sub-Antarctic benthic invertebrates against the omnivorous sea star Odontaster Validus». Polar Biol., 36: 13-25. Tian, Y. [et al.] (2017). «Secondary metabolites from polar organisms». Mar. Drugs, 15: 28. Torssel, K. B. G. (1983). Natural product chemistry: A mechanistic and biosynthetic approach to secondary metabolism. Nova York: J. Wiley. Vankayala, S. L. [et al.] (2017). «Elucidating a chemical defense mechanism of Antarctic sponges: A computational study». J. Mol. Graph Model., 71: 104-115. Wiencke, C. [et al.] (2014). «Macroalgae». A: Broyer, C. de [et al.] (ed.). Biogeographic atlas of the Southern Ocean. Cambridge: Scientific Committee on Antarctic Research. Wiencke, C.; Clayton, M. N. (2002). Synopses of the Antarctic benthos. Vol. 9: Antarctic Seaweeds. Liechtenstein: A. R. G. Gantner Verlag KG Ruggell. Wilson, N. G. [et al.] (2013). «A species flock driven by predation? Secondary metabolites support diversification of slugs in Antarctica». PLoS One, 8: e80277. Young, E. B. [et al.] (2007). «Seasonal variations in nitrate reductase activity and internal N pools in intertidal brown algae are correlated with ambient nitrate concentrations». Plant Cell Environ., 30: 764-774. Young, R. M. [et al.] (2015). «Structure and function of macroalgal natural products». A: Stengel, D.; Connan, S. (ed.). Natural products from marine algae. Nova York: Humana Press, 39-73. (Methods in Molecular Biology)
Treballs de la Societat Catalana de Biologia, 70: 33-38
29/3/21 14:58
Els gegants marins que ens visiten Beatriu Tort,1,2 Eduard Degollada,2 Natàlia Amigó2 i Francesc Peters1 1
DOI: 10.2436/20.1501.02.190
2
ISSN (ed. impresa): 0212-3037
Institut de Ciències del Mar (ICM-CSIC) Associació Edmaktub
ISSN (ed. digital): 2013-9802
Correspondència: Beatriu Tort. Institut de Ciències del Mar (ICM-CSIC). Passeig Marítim de la Barceloneta, 37-49. 08003 Barcelona. Adreça electrònica: cesc@icm.csic.es.
http://revistes.iec.cat/index.php/TSCB Rebut: 30/04/2019 Acceptat: 09/08/2019
Resum
The marine giants that visit us
El rorqual comú (Balaenoptera physalus) s’albira a les costes del Garraf (Mediterrani nord-occidental) entre els mesos de març i maig. Els albiraments es produeixen sobretot en una zona al límit de la plataforma continental i a prop del canyó del Foix que es caracteritza per una elevada producció de krill (Meganyctiphanes norvegica). En aquest estudi relacionem els albiraments entre 2014 i 2018 amb la clorofil·la mesurada des de satèl·lit, com a proxi de producció del sistema. El nombre més gran d’albiraments és a l’abril, al voltant d’un mes més tard que el pic màxim de clorofil·la. Al llarg de l’any, els albiraments tenen una relació molt alta amb la clorofil·la menys per a l’any 2018, que és atípic. Malgrat la variabilitat en les dades d’albiraments, fent correlacions creuades, hi ha una tendència entre el nombre d’albiraments a la zona de màxims albiraments i la clorofil·la d’uns vint-i-quatre dies abans. Sembla, doncs, que els rorquals comuns troben en el Garraf una zona on poden alimentar-se mentre fan la seva ruta migratòria anual.
Summary
Paraules clau: Balaenoptera physalus, costa del Garraf, primavera, clorofil· la, alimentació.
The fin whale (Balaenoptera physalus) can be sighted along the coast of Garraf (NW Mediterranean) between March and May. Sightings occur mainly in an area at the edge of the continental shelf and in the surroundings of the Foix Canyon, an area which is characterized by an elevated krill (Meganyctiphanes norvegica) production. In this study, we relate the sightings from 2014 to 2018 to satellite-measured chlorophyll as a system production proxy. The largest number of sightings is in April, about a month after the maximum chlorophyll peak. Annually, sightings showed a very close relationship to chlorophyll, except in 2018, which was an outlier year. Despite the variability in the sighting data, cross-correlations show a positive relationship between the number of sightings in the maximum sighting area and the chlorophyll concentration from about 24 days earlier. It would thus appear that the waters off the Garraf coast are a feeding area for fin whales on their annual migratory route.
Keywords: Balaenoptera physalus, Garraf coast, spring, chlorophyll, feeding.
Introducció El rorqual comú (Balaenoptera physalus), amb adults de 70 t i 21 m de llargada, és el segon animal més gran que habita el planeta Terra, només superat pel rorqual blau o balena blava (Balaenoptera musculus). B. physalus té una distribució cosmopolita en zones temperades i fredes (Edwards et al., 2015) i ha estat objecte d’una forta pressió balenera arreu. Malgrat que és l’únic cetaci misticet comú en el Mediterrani (Notarbartolo di Sciara et al., 2003) està en un estat de conservació vulnerable (Cooke, 2018). S’alimenta de petits crustacis, especialment de krill (Meganyctiphanes norvegica) però també de petits peixos pelàgics, que filtra a través d’unes estructures quitinoses, les barbes (Aguilar, 1985; Crespo et al., 2003). Tot i que s’han trobat cetacis morts a les costes d’arreu del Mediterrani, la distribució dels rorquals és principalment al Mediterrani occidental, i se centra a l’estiu a la zona del mar de Ligúria. És estrany veure’ls a la conca oriental i al mar Adriàtic (Aguilar et al., 2002). Són animals pelàgics d’aigües profundes tot i que, a certes regions, també se’ls pot trobar a zones properes a la costa amb menys profunditat
(Canese et al., 2006). Degut a l’abundància de cetacis durant els mesos d’estiu, especialment B. physalus i Stenella coeruleoalba (Forcada et al., 1996; Gannier, 1997; Gannier, 1998), al mar de Ligúria i al nord del Tirrè es va crear el santuari Pelagos, una àrea marina protegida des del 2002. A part de Ligúria també s’han localitzat congregacions del rorqual comú a la zona de l’estret de Messina a finals d’estiu i durant la tardor (Aïssi et al., 2008) i al voltant de l’illa de Lampedusa durant els mesos de gener a març. Aquesta zona s’ha definit com una zona d’alimentació del rorqual comú a l’hivern (Canese et al., 2006). Al mar Tirrè també es poden trobar al llarg de l’any amb uns pics d’abundància que tenen lloc durant el mesos d’abril a maig i de setembre a octubre (Marini et al., 1996; Nascetti i Notarbartolo di Sciara, 1997) tot i que cada vegada es troben amb més freqüència també durant els mesos d’estiu (Arcangeli et al. 2008; Arcangeli et al. 2014). Aquesta població del voltant d’Itàlia seria la que es considera resident del Mediterrani (Bérubé et al. 1998, Notarbartolo di Sciara et al., 2003, Castellote et al., 2012). A més de la població descrita al mar de Ligúria i el mar Tirrè hi ha una altra població Treballs de la Societat Catalana de Biologia, 70: 39-44
Revista TSCB 70.indd 39
que ve de l’Atlàntic creuant l’estret de Gibraltar cap al Mediterrani durant els mesos de novembre a gener i sortint a l’Atlàntic durant els mesos de maig a juliol (Andréu et al., 2010; Druon et al., 2012; Gauffier et al., 2018). Tot i així, usant marcadors químics, costa diferenciar aquests individus d’alguns rorquals residents a la Mediterrània (Giménez et al., 2013). A la zona costanera catalana és freqüent observar B. physalus entre els mesos de febrer i juny, sovint a unes 10-15 milles nàutiques de la costa, però també més a prop de terra, sobretot a les zones on hi ha canyons submarins. És possible que la població que creui l’estret de Gibraltar sigui la que freqüenti les costes catalanes durant aquests mesos. Els canyons submarins són estructures que solen travessar perpendicularment la plataforma continental i el talús, de manera que la batimetria s’enfonsa ràpidament a prop de la costa. Aquestes estructures solen provocar girs en els corrents marins i advecció d’aigües profundes riques en nutrients que alimenten el creixement de plàncton (Allen et al., 2001). Els marges dels canyons solen ser rics en crustacis, incloent el krill, aliment preferit dels misticets, i en general solen ser àrees ri-
39
29/3/21 14:58
Beatriu Tort, Eduard Degollada, Natàlia Amigó i Francesc Peters
ques en pesca. Mussi et al. (1999) van observar que B. physalus es concentrava al voltant del canyó de Cuma (mar Tirrè sud), una zona més productiva que les aigües del voltant. Com a norma general, l’alimentació de B. physalus en el Mediterrani s’ha observat sobretot de manera indirecta a través d’excrements (Notarbartolo di Sciara et al., 2003), a la primavera-estiu i en zones o bé de canyons o de fronts hidrogràfics o altres que incrementen la producció de krill respecte d’aigües adjacents (Sabatés et al., 1989). El rorqual comú és un animal migrador i amb una gran mobilitat en cerca d’aliment, de manera que relacionar els albiraments amb variables biològiques i oceanogràfiques té un gran interès. Fer un seguiment de zooplàncton en l’espai i el temps per poder relacionar-lo amb la presència de B. physalus segueix essent impossible amb la tecnologia actual. Per això es recorre a un nivell tròfic inferior, el fitoplàncton, que serveix d’aliment al krill i al zooplàncton en general. El fet que la determinació de la clorofil·la, com a proxi de la biomassa de fitoplàncton (Wernand et al., 2013) sigui una mesura relativament fàcil i que es pot realitzar tant amb sensors locals com remots (en satèl·lits) fa possible intentar establir relacions entre la biomassa de fitoplàncton i la presència de balenes. El Mediterrani és un mar oligotròfic, amb una producció mitjana baixa (Longhurst, 1995; Turley et al., 2000; Durrieu de Madron et al., 2011). El seu cicle anual passa per una època de barreja vertical entre finals de tardor i hivern, de manera que les aigües riques en nutrients de les zones profundes arriben a la superfície on hi ha llum perquè el fitoplàncton els pugui aprofitar per créixer. Els pics de clorofil·la en superfície es donen a grans trets entre desembre i abril, depenent de les zones, i això desencadena el creixement posterior de zooplàncton i l’aprofitament per nivells tròfics superiors. A la primavera el mar s’escalfa prou per estratificar la columna d’aigua, amb una capa superficial més calenta separada de la capa profunda i freda rica en nutrients. A mesura que en la capa superficial s’esgoten els nutrients i el fitoplàncton és consumit, també decreix el nivell de clorofil·la, amb mínims al voltant d’agost, fins que comença un nou cicle. Tenint en compte aquest cicle i dins de la baixa producció en el Mediterrani, la regió del gir ciclònic del golf de Lleó a la Mediterrània nord-occidental i zones adjacents com el mar de Ligúria, són les àrees més productives d’aquest mar, juntament amb algunes altres
40
Revista TSCB 70.indd 40
zones costaneres i locals. Per tant, aquesta zona del Mediterrani nord-occidental és la més favorable per a l’alimentació del rorqual comú i altres animals marins. Diferents estudis intenten relacionar la clorofil·la i d’altres variables oceanogràfiques amb la presència de B. physalus per determinar les zones on amb més probabilitat es pugui albirar o trobar aquesta espècie (Littaye et al., 2004; Arcangeli et al., 2013). Laran i Gannier (2008), amb dades de Pelagos de mar obert, van desenvolupar un model d’absència/presència de B. physalus on la clorofil·la era una de les variables estadísticament significatives i la temperatura tenia una relació negativa. S’ha de tenir en compte que la relació entre la clorofil·la i la presència de rorqual comú és una relació indirecta que comporta un cert decalatge en el temps, ja que com a mínim s’ha de donar temps al zooplàncton a incrementar la seva biomassa a partir del fitoplàncton. I també és cert que la clorofil·la, a partir de dades de satèl·lit, no inclou possibles pics de creixement de fitoplàncton per sota dels 10 m superficials aproximadament. Tot plegat dificulta trobar bones relacions (Littaye et al., 2004). Tot i això s’ha vist que els canvis en els factors oceanogràfics tenen un paper important en la determinació de la disponibilitat d’aliment i en el moment de la migració de les balenes (Arcangeli et al., 2013). La zona costanera del Garraf està afectada per la càrrega de nutrients del riu Llobregat, cosa que determina uns fons amb molta matèria orgànica. La dinàmica del nutrients també es veu influenciada per la presència de canyons submarins i per la presència d’un front hidrogràfic paral·lel a la costa. Totes aquestes condicions en principi afavoreixen la presència de zooplàncton i dels animals que se n’alimenten. La presència de B. physalus hi és recurrent sobretot entre els mesos de març i maig. L’objectiu d’aquest estudi és relacionar la presència de rorquals comuns amb la producció del sistema en la zona davant les costes de Garraf, tenint com a hipòtesi que el nivell de clorofil·la determina el nombre d’animals albirats.
Material i mètodes Zona d’estudi La zona d’estudi comprèn uns 1.300 km2 en el Mediterrani nord-occidental que van des de Castelldefels (41,2647° N, 1,9606° E) fins a Torredembarra (41,1307° N, 1,3996° E) i s’endinsa uns 28 km en el mar (vegeu la figura 1). És una zona caracteritzada pel corrent liguro-provençal dominant (Millot i
Taupier-Letage, 2005), que va de nord-est a sud-oest, i una circulació superficial de l’aigua a la zona costanera marcada pel règim ventós i l’equilibri de densitats entre l’aigua dolça i l’aigua salada (Sabatés et al., 1989). La zona comprèn la plataforma i el talús continental en el qual trobem dos canyons submarins. El més destacat seria el canyó del Foix, que es troba a 10,5 km de la costa, al límit de la plataforma, a una profunditat de 90 m i que arriba als 2.000 m de profunditat. El canyó submarí de Cunit també es troba dins de la zona d’estudi. Aquests canyons actuen com a conducte preferent des de la base de la plataforma fins al fons submarí i tenen un paper molt important en la circulació costanera regional (Hickey, 1995; Puig et al., 2000). En l’estudi de Danovaro et al. (1999) es troba una elevada riquesa d’aminoàcids i fitopigments en els sediments del canyó del Foix, la qual cosa reflecteix una gran productivitat. La zona d’estudi ha estat declarada lloc d’importància comunitària (LIC), zona d’especial protecció per a les aus (ZEPA) i pertany a la Red Natura 2000 i al Pla d’Espais d’Interès Natural (PEIN).
Albiraments de rorquals comuns Des del 2014 es duen a terme campanyes oceanogràfiques durant els mesos de març a maig. Les sortides, d’entre sis i vuit hores, es realitzen amb el vaixell Maktub, un catamarà de 14 m d’eslora amb sortida i arribada al port de Vilanova i la Geltrú. Durant aquest temps es fan transsectes dins de la zona d’estudi, cobrint tota l’àrea com a mínim una vegada cada dues setmanes. Durant les sortides es realitza un protocol d’esforç d’observació que comença a una fondària de 30 m i que consisteix en quatre investigadors que visualment cobreixen una àrea de 90° cadascú respecte de l’embarcació. Per evitar la fatiga visual es fa una rotació cada trenta minuts, amb trenta minuts de descans per hora d’esforç. Durant aquest temps també s’anoten dades meteorològiques i de navegació per tenir un registre en el cas que canviessin les condicions i que aquestes poguessin afectar l’esforç. El protocol d’esforç es realitza sota bones condicions meteorològiques (Beaufort 0-3). A l’albirar un cetaci s’atura l’esforç i s’anoten les dades de posició, espècie, nombre d’animals i comportament. Un albirament pot consistir a veure un o més animals i per tant el nombre d’animals serà sempre igual o superior al nombre d’albiraments.
Treballs de la Societat Catalana de Biologia, 70: 39-44
29/3/21 14:58
Els gegants marins que ens visiten
Mediterrani NO
Figura 1. Mapes de situació de la zona estudiada en el marc del Mediterrani nord-occidental. Els punts mostren els centroides de les àrees de 5 × 5 píxels respecte de les dades de satèl·lit de la clorofil·la (aprox. 25 km2). Els punts de color taronja fan referència a una zona més reduïda utilitzada per les dades de correlació creuada amb decalatges respecte de l’albirament de rorquals (elaboració pròpia).
Clorofil·la La clorofil·la s’ha extret de la base de dades de Copernicus Marine environment monitoring service (http://marine.copernicus.eu). S’han fet servir dades dels satèl·lits MODIS-Aqua i VIIRS-NPP corregides amb les bandes SeaWiFS, i s’han eliminat així les possibles diferències entre els satèl·lits (Mélin et al., 2017). La base de dades de Copernicus està partida en dos blocs, del 2014 al 2017 i el 2018. Les dades dels primers quatre anys d’estudi són reprocessades (Couto et al., 2016), a partir de dades del Mediterrani ja processades mitjançant els algoritmes MedOC4 (Case 1 water, Volpe et al., 2007) i AD4 (Case 2 water, D’Alimonte i Zibordi, 2003). Les dades del 2018 estan processades pels algoritmes MedOC4 (Case 1 water, Volpe et al., 2007) o CoASTS (Berthon et al., 2002). Ambdues sèries de dades són de nivell L3 i tenen una resolució temporal d’un dia i una resolució espacial d’1 km2. Hem eliminat els dies per als quals hi havia menys del 30 % de cobertura espacial dins la nostra zona d’estudi. També s’eliminen els píxels corresponents a una profunditat de fons marí inferior als 50 m, ja que no s’ha descrit la presència de rorquals a la nostra zona d’estudi a una profunditat menor. Les dades de profunditat del fons marí s’han extret a partir de la plataforma EMODnet, amb una
resolució de 0,002°. Després, les dades s’han agregat tant espacialment com temporalment per reduir part del soroll inherent. Espacialment fem servir àrees de 5 × 5 km2. Temporalment, per a cada any, hem fet mitjanes temporals de vuit dies, començant pel dia 1 de gener de cada any, com és costum amb aquest tipus de dades (Arcangeli et al., 2013; Littaye et al., 2004; Laran i Gannier, 2008). Les dades de clorofil·la tenen un rang de més d’un ordre de magnitud. Abans de fer mitjanes sempre s’aplica una transformació logarítmica que apropa la distribució de les dades a la normalitat.
Processament numèric de les dades Les dades d’albiraments s’han agrupat en períodes de vuit dies per coincidir amb la mitjana temporal de la clorofil·la. El nombre d’albiraments i el nombre d’animals albirats en tota la zona d’estudi durant un període s’estandarditzen dividint-los per l’esforç realitzat usant el nombre de sortides que s’han dut a terme durant aquells vuit dies. Per comptabilitzar l’esforç en cada una de les àrees individuals de 5 × 5 km2 es compta el nombre de quilòmetres recorreguts dins de l’àrea. Així també delimitem una zona més petita (zona de màxima intensitat) que conté el 90 % dels quilòmetres recorreguts i que ens Treballs de la Societat Catalana de Biologia, 70: 39-44
Revista TSCB 70.indd 41
servirà per fer correlacions creuades (decalatges temporals) amb la clorofil·la.
Resultats L’anàlisi de la clorofil·la superficial ens mostra el típic pic d’hivern-primavera, en aquest cas amb el màxim al mes de març (vegeu la figura 2a), amb una baixada posterior els mesos d’abril i maig a mesura que el fitoplàncton és consumit. Òbviament hi ha una variabilitat amb algunes setmanes on la clorofil·la presenta valors alts fora del mes de març però la tendència és clara i la clorofil·la als mesos de febrer i març és estadísticament més alta que als mesos d’abril i maig (p < 0,001). Per altra banda, malgrat una gran variabilitat, els valors mitjans per als mesos de febrer a maig presenten una certa baixada l’any 2015 i una tendència general a pujar entre els anys 2014 i 2018, encara que la pujada més important sembla ser la del 2018 (vegeu la figura 2b). De totes maneres no hi ha diferències estadísticament significatives entre els anys. Quant als albiraments i els animals observats, es mostraran sempre els valors del nombre d’animals ja que hi ha una relació molt bona entre el nombre d’animals i el d’albiraments (1,436 ± 0,048 animals albirament-1, R2 = 0,90, p < 0,001). Les dades del nombre d’animals observats en un període de vuit dies normalitzades als dies d’esforç en aquest
41
29/3/21 14:58
Beatriu Tort, Eduard Degollada, Natàlia Amigó i Francesc Peters
0,5
a
8
0,4
Clorofil·la a (mg m-3)
Clorofil·la a (mg m-3)
0,4
10
b
0,3
0,2
0,1
0,3
Animals
0,5
0,2
Febrer
Març
Abril
0 0,17
0
Maig
2014
2015
Mesos
2016
2017
2018
Anys
Figura 2. Distribució dels valors de la clorofil·la superficial amb dades de mitjanes de vuit dies de la zona gran mostrada a la figura 1. Les caixes engloben el 50 % de les dades amb una línia que marca la mediana. Les línies verticals per sota i per sobre marquen l’extensió de la distribució. Els punts blancs que s’estenen més enllà són valors atípics, mentre que el punt negre és la mitjana aritmètica. Es pot observar la distribució per mesos (a) amb dades dels anys 2014-2018 i la distribució per anys (b) amb dades dels mesos de febrer, març, abril i maig (elaboració pròpia). 50
50
a
Animals albirats
Animals albirats
40
30
20
10
y = -7,82 + 49,93x R2= 0,96
0,18
0,19
0,20
0,21
0,22
0,23
0,24
0,25
Clorofil·la (mg m-3)
Figura 4. Regressions entre el nombre d’animals albirats (març a maig) per període de vuit dies (símbol negre) i per dia d’esforç (símbol gris) i la clorofil·la mitjana anual (febrer a maig). Les dades de l’any 2018 no s’han tingut en compte per a les regressions (elaboració pròpia).
ra 5). Sí que veiem una tendència de la correlació a augmentar amb un decalatge de tres períodes de vuit dies respecte de la clorofil·la, que és significativa amb una p < 0,05 per als albiraments. Tot i que les inferències a la causalitat són sempre complicades, sembla clar que la presència de balenes estaria relacionada amb la quantitat de clorofil·la al voltant de vint-i-quatre dies abans.
b
40
y = -42,51 + 259,63x R2= 0,97
4
2
0,1
0
6
30
20
10
0
0 Març
Abril
Maig
Mesos
2014
2015
2016
2017
2018
Anys
Figura 3. Distribució dels valors del nombre d’animals albirats amb dades mitjanades cada vuit dies de la zona gran mostrada a la figura 1. Caixes i punts com a la figura 2. S’observa la distribució per mesos (a) amb dades dels anys 2014-2018 i la distribució per anys (b) amb dades del mesos de març, abril i maig (elaboració pròpia).
període també presenten una relació lineal molt bona amb les dades no normalitzades (0,061 ± 0,001 animals normalitzats animals-1, R2 = 0,95, p < 0,001) i tampoc no es presentaran aquí perquè són repetitives. La tendència del nombre d’animals és similar a la de la clorofil·la, però amb el pic desplaçat al mes d’abril i sempre tenint en compte una certa variabilitat i alguns valors atípics (vegeu la figura 3a). El nombre d’animals també presenta una tendència pluriennal similar a la de la clorofil·la entre el 2014 i el 2018, amb l’excepció de l’any 2018, on no s’aprecia una pujada mitjana dels animals que sí que s’observa amb la clorofil·la (vegeu la figura 3b). Es pot observar que el
42
Revista TSCB 70.indd 42
2018 hi ha un valor atípic en el nombre d’animals albirats. Fa referència als animals albirats entre l’última setmana de març i la primera d’abril, que va ser una setmana amb molts rorquals a la zona d’estudi. La tendència similar del nombre d’animals albirats i la clorofil·la mitjana al llarg dels anys (vegeu la figura 2b i la figura 3b) queda palesa en la figura 4, sempre tenint en compte que es considera el 2018 com un valor atípic i no es fa servir per a la regressió. Amb les dades de la zona de màxima intensitat de mostreig es veu que les correlacions entre la clorofil·la i els albiraments i el nombre d’animals albirats són baixes (vegeu la figu-
Discussió i conclusions Sembla que la quantitat de clorofil·la és una variable determinant per entendre la presència de B. physalus a la zona d’estudi. Hi ha una tendència amb la clorofil·la mitjana durant els mesos de febrer a maig. El decalatge mensual entre els albiraments, amb un màxim a l’abril, i el pic de clorofil·la en el març té una correspondència amb les correlacions amb decalatges de períodes de vuit dies en la zona de màxima intensitat d’observació que dona un valor positiu per als albiraments després de vint-i-quatre dies. Anteriorment s’han suggerit relacions pluriennals entre el nivell de clorofil·la i la presència d’animals (Littaye et al., 2004; Cotté et al., 2009; Druon et al., 2012; Arcangeli et al., 2013). A altres zones també s’han descrit decalatges en el temps similars (Littaye et al., 2004; Colella i Santoleri, 2006; Laran i Gannier, 2008; Panigada et al., 2008; Druon et al. 2012). En moltes d’aquestes zones la presència d’animals és de més durada que en la zona del Garraf i no tan relacionada amb el patró migratori. Al mar de Ligúria les zones riques en clorofil·la venen donades per afloraments i els
Treballs de la Societat Catalana de Biologia, 70: 39-44
29/3/21 14:58
Els gegants marins que ens visiten
0,3
se alimentar-se no esperaríem trobar una relació positiva amb la clorofil·la. Els valors de les correlacions amb la clorofil·la són força baixos i hi ha un alt nivell de variabilitat. Això pot estar causat per altres factors que no s’han pogut tenir en compte i que potser són importants, de manera que encara hi ha molt marge per obtenir millors relacions. Per exemple, és sospitós que la clorofil·la sigui anòmala l’any 2018 quan la sèrie temporal per a aquest any no ha estat encara reprocessada i per tant homogeneïtzada amb la resta de la sèrie. També és un any anòmal pel que fa als albiraments, amb la majoria d’albiraments concentrats en el període que va del 30 de març al 3 d’abril, la qual cosa comporta una distribució més allunyada de la normalitat. També és important tenir en compte que els mètodes d’observació tenen les seves limi-
tacions logístiques i metodològiques. Hi ha una variabilitat en el nombre de sortides. No hi ha una cobertura d’observació igual en totes les àrees de mostreig i és possible que ens estiguem perdent la presència d’animals en algunes àrees. Les observacions de grans animals marins sempre es tradueixen en nombres petits i els valors mitjans són més susceptibles d’afectació per valors atípics i això dificulta les anàlisis estadístiques. Tanmateix, el mostreig s’ha d’optimitzar i es fa sobre la base del nostre coneixement expert, tant d’anys anteriors com dels dies previs. Però també es fa sobre la base de les notificacions dels pescadors locals que cobreixen una zona més extensa i dels quals rebem avisos d’albiraments de manera sistemàtica i coordinada. Per tant, el fet que la relació entre la clorofil·la i la presència de rorquals comuns a la zona del Garraf, malgrat no ser alta, és estadísticament significativa, ens indica una presència temporal a la zona que no està deslligada de la producció del sistema, com es podria pensar si només estiguéssim visualitzant una ruta migratòria. Recentment s’han observat rorquals comuns a la zona amb un clar comportament d’alimentació (dades no publicades), la qual cosa confirma les evidències d’alimentació a través de les defecacions i de la relació amb la clorofil·la. La zona de la costa del Garraf es pot considerar, doncs, una zona d’alimentació del rorqual comú durant la seva migració els mesos de primavera. Podem concloure que els gegants marins que ens visiten cada any com a part del seu cicle migratori aprofiten unes àrees relativament productives en la zona del Garraf dins un mar Mediterrani en general molt pobre d’aliment, com si es tractés d’una àrea de servei en una autopista.
using a non-dedicated ferry as a observation platform». A: Pierce, G. J. [et al.]. Proceedings of the twenty-second annual conference of the European Cetacean Society. Egmond aan Zee: European Cetacean Society. — (2013). «Changes in cetacean presence, relative abundance and distribution over 20 years along a trans- regional fixed line transect in the Central Tyrrhenian Sea». Marine Ecology, 34: 112-121. — (2014). «Exploring thermal and trophic preference of Balaenoptera physalus in the central Tyrrhenian Sea: A new summer feeding ground?». Marine Biology, 161: 427-436. Berthon, J.-F. [et al.] (2002). Coastal Atmosphere and Sea Time Series (CoASTS), Part 2: Data analysis. Greenbelt: NASA Goddard Space Flight Center. (SeaWiFS Postlaunch Technical Report Series) Bérubé, M. [et al.] (1998). «Population genetic structure of North Atlantic, Mediterranean Sea and Sea of
Cortez fin whales, Balaenoptera physalus (Linnaeus 1758): Analysis of mitochondrial and nuclear loci». Molecular Ecology, 7: 585-599. Canese, S. [et al.] (2006). «The first identified winter feeding ground of fin whales (Balaenoptera physalus) in the Mediterranean Sea». J. Mar. Biol. Assoc. UK, 86: 903-907. Castellote, M. [et al.] (2012). «Fin whale (Balaenoptera physalus) population identity in the western Mediterranean Sea». Mar. Mamm. Sci., 28: 325-344. Colella, S.; Santoleri, R. (2006). «Variabilità interannuale della produzione primaria nel Mar Mediterraneo: 8 anni di osservazioni SeaWiFS». A: Carli, B. [et al.] (ed.). Clima e cambiamenti climatici: Le attività del CNR, 525-528. Cooke, J. G. (2018). «Balaenoptera physalus. The IUCN Red List of Threatened Species 2018: e.T2478A50349982». <http://dx.doi.org/10.2305/IUCN.UK.2018-2.RLTS. T2478A50349982.en> [Consulta: 30 abril 2019].
0,3
a
0,1
0,1
r
0,2
r
0,2
b
0
0
-0,1
-0,1
-0,2
núm. albiraments 0
1
2
3
4
Decalatge
-0,2
núm. animals albirats 0
1
2
3
4
Decalatge
Figura 5. Valor de la correlació de Pearson. Correlacions creuades entre la clorofil·la i el nombre d’albiraments (a) i el nombre d’animals albirats (b). Els decalatges corresponen a períodes de vuit dies. Les dades són de les àrees de la zona petita de la figura 1. Barra grisa (valor estadísticament no significatiu); barra negra (p < 0,05) (elaboració pròpia).
rorquals comuns s’albiren en aigües que tenen al voltant de 2.000 m de fondària. Però també hi ha balenes alimentant-se a zones costaneres, com a l’illa de Lampedusa a l’hivern (Canese et al., 2006). Els animals tenen en aquestes àrees un aliment abundant en forma de krill i petits peixos pelàgics. Aquestes poblacions, òbviament, tenen un decalatge d’unes setmanes respecte de la biomassa de fitoplàncton representada per la clorofil·la. En la costa del Garraf, la zona de màxima intensitat de mostreig i albiraments, que no deixa de ser relativament poc fonda (50 a 200 m), coincideix amb l’enfonsament de la plataforma continental i amb els canyons submarins on més abunda el krill. Malgrat això, fins fa poc només es tenia evidència indirecta i anecdòtica, a través de defecacions, que els rorquals s’estaven alimentant. Si els animals només migressin sen-
Bibliografia Aguilar, A. (1985). Biología y dinámica poblacional del rorcual común (Balaenoptera physalus) en aguas atlánticas ibéricas. Tesi doctoral. Barcelona: Universitat de Barcelona. Aguilar, A. [et al.] (2002). «Geographical and temporal variation in levels of organochlorine contaminants in marine mammals». Mar. Environ. Res., 53: 425-452. Aïssi, M. [et al.] (2008). «Large-scale seasonal distribution of fin whales (Balaenoptera physalus) in the central Mediterranean Sea». J. Mar. Biol. Assoc. UK, 88: 12531261. Allen, S. E. [et al.] (2001). «Physical and biological processes over a submarine canyon during an upwelling event». Can. J. Fish. Aquat. Sci., 58: 671-684. Andréu, E. [et al.] (2010). «Migración de rorcual común (Balaenoptera physalus) a través del estrecho de Gibraltar». Almoraima, 40: 99-105. Arcangeli, A. [et al.] (2008). «Monitoring cetacean populations over 15 years in the Central Tyrrhenian Sea
Treballs de la Societat Catalana de Biologia, 70: 39-44
Revista TSCB 70.indd 43
43
29/3/21 14:58
Beatriu Tort, Eduard Degollada, Natàlia Amigó i Francesc Peters
Cotté, C. [et al.] (2009). «Scale-dependent habitat use by a large free-ranging predator, the Mediterranean fin whale». Deep-Sea Res. I, 56: 801-811. Couto, A. B. [et al.] (2016). «Inter-comparison of OCCCI chlorophyll-a estimates with precursor datasets». International Journal of Remote Sensing, 37: 43374355. Crespo, E. A. [et al.] (2003). Dolphins, whales and porpoises: 2002-2010 conservation action plan for the world’s cetaceans. Gland: IUCN. [IUCN/SSC Cetacean Specialist Group] D’Alimonte, D.; Zibordi, G. (2003). «Phytoplankton determination in an optically complex coastal region using a Multilayer Perceptron Neural Network». IEEE Trans. Geosci. Remote Sens., 41: 2861-2868. Danovaro, R. [et al.] (1999). «Benthic response to particulate fluxes indifferent trophic environments: A comparison between the Gulf of Lions-Catalan Sea (western-Mediterranean) and the Cretan Sea (eastern- Mediterranean)». Progress in Oceanography, 44: 287312. Druon, J.-N. [et al.] (2012). «Potential feeding habitat of fin whales in the western Mediterranean Sea: An environmental niche model». Marine Ecology Progress Series, 464: 289-306. Durrieu de Madron, X. [et al.] 2011. «Marine ecosystems’ responses to climatic and anthropogenic forcings in the Mediterranean». Progress in Oceanography, 91: 97-166. Edwards, E. F. [et al.] (2015). «Global distribution of fin whales Balaenoptera physalus in the post-whaling era (1980–2012)». Mammal Review, 45: 197-214. Forcada, J. [et al.] (1996). «Distribution and abundance of fin whales (Balaenoptera physalus) in the western Mediterranean Sea during the summer». J. Zool., 238: 23-34. Gannier, A. (1997). «Estimation de l’abondance estivale du rorqual commun Balaenoptera physalus (Linné, 1758) dans le bassin liguro-provençal (Méditerranée nord-occidentale)». Rev. Ecol. (Terre Vie), 52: 69-86.
44
Revista TSCB 70.indd 44
—
(1998). «Les cétacés de Méditerranée nord-occidentale: nouveaux résultats sur leur distribution, la structure de leur peuplement et l’abondance relative des différentes espèces». Mésogée, 56: 3-19. Gauffier, P. [et al.] (2018). «Contemporary migration of fin whales through the Strait of Gibraltar». Mar. Ecol. Prog. Ser., 588: 215-228. Giménez, J. [et al.] (2013). «Isotopic evidence of limited exchange between Mediterranean and eastern North Atlantic fin whales». Rapid Commun. Mass Spectrom., 27: 1801-1806. Hickey, B. M. (1995). «Coastal submarine canyons». A: Müller, P.; Henderson, D. (ed.). Proceedings of ‘Aha Huliko’a Workshop on Flow Topography Interactions. Honolulu: University of Hawaii, 95-110. [SOEST Special Publication] Laran, S.; Gannier, A. (2008). «Spatial and temporal prediction of fin whale distribution in the northwestern Mediterranean Sea». ICES Journal of Marine Science, 65: 1260-1269. Littaye, A. [et al.] (2004). «The relationship between summer aggregation of fin whales and satellite-derived environmental conditions in the northwestern Mediterranean Sea». Remote Sensing of Environment, 90: 44-52. Longhurst, A. (1995). «Seasonal cycles of pelagic production and consumption». Progress in Oceanography, 36: 77-177. Marini, L. [et al.] (1996). «Wintering areas of fin whales (Balaenoptera physalus) in the Mediterranean sea: A preliminary survey». A: Evans, P. G. H.; Nice, H. (ed.). European research on cetaceans. Proceedings of the 9th annual conference of the European Cetacean Society. Cambridge: European Cetacean Society, 126-128. Mélin, F. [et al.] (2017). «Assessing the fitness-for-purpose of satellite multi-mission ocean color climate data records: A protocol applied to OC-CCI chlorophyll-a data». Remote Sensing of Environment, 203: 139-151. Millot, C.; Taupier-Letage, I. (2005). «Circulation in the Mediterranean Sea». A: Salliot, A. (ed.). The Mediter-
ranean Sea. Handbook of Environmental Chemistry. Berlín; Heidelberg: Springer-Verlag, 29-66. Mussi, B. [et al.] (1999). «Fin whale (Balaenoptera physalus) feeding ground in the coastal waters of Ischia (Archipelago Campano)». A: Evans, P. G. H. [et al.] (ed.). European Research on Cetaceans. Proceedings of the 13th Annual Conference of the European Cetacean Society. Cambridge: European Cetacean Society, 330-335. Nascetti, D.; Notarbartolo di Sciara, G. (1997). «A fin whale and sperm whale sighting programme undertaken by the Italian Navy in the Central Mediterranean Sea». A: European Research on Cetaceans: Proceedings of the 10th Annual Conference of the European Cetacean Society. Kiel: P. G. H. Evans, 150-153. Notarbartolo di Sciara, G. [et al.] (2003). «The fin whale Balaenoptera physalus (L. 1758) in the Mediterranean Sea». Mammal Review, 33: 105-150. Panigada, S. [et al.] (2008). «Modelling habitat preferences for fin whales and striped dolphins in the Pelagos Sanctuary (western Mediterranean Sea) with physiographic and remote sensing variables». Remote Sens. Environ., 112: 3400-3412. Puig, P. [et al.] (2000). «Deep slope currents and suspended particle fluxes in and around the Foix submarine canyon (NW Mediterranean)». Deep-Sea Res. I: Oceanographic Research Papers, 47: 343-366. Sabatés, A. [et al.] (1989). «Relationship between zooplankton distribution, geographic characteristics and hydrographic patterns off the Catalan coast (Western Mediterranean)». Marine Biology, 103: 153-159. Turley, C. M. [et al.] (2000). «Relationship between primary producers and bacteria in an oligotrophic sea: The Mediterranean and biogeochemical implications». Marine Ecology Progress Series, 193: 11-18. Volpe, G. [et al.] (2007). «The colour of the Mediterranean Sea: Global versus regional bio-optical algorithms evaluation and implication for satellite chlorophyll estimates». Remote Sensing of Environment, 107: 625-638. Wernand, M. R. [et al.] (2013). «Trends in ocean colour and chlorophyll concentration from 1889 to 2000, worldwide». PLoS ONE, 8: e63766.
Treballs de la Societat Catalana de Biologia, 70: 39-44
29/3/21 14:58
Dels mites a la realitat: com comunicar l’aqüicultura Lourdes Reig1,2 i Rosa Flos1 1
DOI: 10.2436/20.1501.02.191
2
ISSN (ed. impresa): 0212-3037
Departament d’Enginyeria Agroalimentària i Biotecnologia, Universitat Politècnica de Catalunya Centre de Recerca en Economia i Desenvolupament Agroalimentari (CREDA-UPC-IRTA)
ISSN (ed. digital): 2013-9802
Correspondència: Lourdes Reig. Campus UPC Baix Llobregat. Edifici D4. C/ Esteve Terradas, 8. 08860 Castelldefels. Adreça electrònica: lourdes.reig@upc.edu.
http://revistes.iec.cat/index.php/TSCB Rebut: 31/01/2019 Acceptat: 29/07/2019
Resum L’aqüicultura és un sector complex i divers, que avui aporta el 53 % dels productes pesquers d’ús alimentari al món. El sector ha fet un esforç per desenvolupar una aqüicultura sostenible i responsable que no sempre s’ha sabut explicar. Indústria, acadèmia i Administració sovint han partit d’una visió a la defensiva. Davant d’una decisió de compra, els consumidors tenen dificultats per comprendre el que el producte d’aqüicultura aporta en termes de qualitat, impacte ambiental o benestar animal. La percepció de manca d’informació per part dels consumidors s’ha considerat un coll d’ampolla per al ple desenvolupament del sector. Les fonts d’informació que utilitzen els consumidors (minoristes, certificacions, premsa) no han ajudat a millorar la seva percepció. Es proposa partir d’una visió positiva que emfatitzi els avantatges per als consumidors (qualitat, traçabilitat, sostenibilitat).
Paraules clau: aqüicultura, percepció, consumidors, comunicació, sostenibilitat.
From myths to reality: how to communicate aquaculture Abstract Aquaculture is a complex and diverse sector which now accounts for 53 % of the world’s fish food products. An improvement effort has been made to develop a sustainable and responsible aquaculture, an effort which has not always been correctly presented. Industry, academia and administration have often adopted a defensive attitude. When making a purchase decision, consumers find it hard to understand what an aquaculture product offers in terms of quality, environmental impact or animal welfare. The perception of a lack of information on the part of consumers has been considered a bottleneck for the full development of the sector. The information sources used by consumers (retailers, certifications, press) have not helped to improve this perception. As a starting point, this paper recommends a positive vision that emphasizes aquaculture’s benefits for the consumer (quality, traceability, sustainability).
Keywords: aquaculture, perception, consumers, communication, sustainability.
Introducció L’aqüicultura és un sector relativament nou a les nostres contrades però ja és present a la nostra cistella de la compra. Malgrat la seva contribució a l’alimentació, la relació amb els consumidors necessita millorar. Per tal que la societat apreciï l’aqüicultura, primer l’ha d’entendre. El simple concepte aqüicultura, inclou una gran diversitat d’espècies i sistemes productius, el que no facilita la seva comprensió ni, en conseqüència, la seva comunicació. Com veurem a continuació, nombrosos treballs ens demostren que la percepció que la societat té de l’aqüicultura és força millorable. Entre diverses raons, podem apuntar errors de comunicació en els inicis del sector. Des d’aquest punt de partida, analitzarem les accions de comunicació més notables dels últims anys, que no sempre han tingut els efectes desitjats, i acabarem apuntant algunes idees que poden contribuir a millorar la imatge de l’aqüicultura.
De què parlem quan parlem d’aqüicultura? Sovint es parla d’aqüicultura simplificant en excés el concepte i el que inclou. Parlar-ne, opinar, requereix entrar en el detall de l’enorme diversitat inherent a aquesta activitat. La mateixa definició d’aqüicultura ja obre un ventall de possibilitats molt gran. L’Organització de les Nacions Unides per a l’Agricultura i l’Alimentació (Food and Agriculture Organization, FAO) descriu l’aqüicultura com «el cultiu d’organismes aquàtics, incloent peixos, mol·luscs, crustacis i plantes aquàtiques. L’aqüicultura implica una forma d’intervenció en el procés de criança per millorar-ne la producció, com ara l’alimentació regular, la protecció enfront dels depredadors, etc.». Analitzant la definició de la FAO, veiem que quan emprem el terme espècies d’interès per a l’aqüicultura estem parlant d’una gran diversitat d’espècies animals i vegetals, per tant, amb requeriments vitals completament diferents que requeriran un sistema productiu adaptat, sovint, molt específic. Tanmateix, i Treballs de la Societat Catalana de Biologia, 70: 45-50
Revista TSCB 70.indd 45
encara d’acord amb la definició de la FAO, diem que l’aqüicultura implica alguna forma d’intervenció. Intervenir en el procés productiu pot fer-se des d’una forma subtil, com en els sistemes molt extensius, alguns dels quals ens costaria diferenciar de certes formes de pesca, fins a una intervenció integral, com en els sistemes hiperintensius, en els quals actuem a tots els nivells (organismes, entorn, aigua). Vol dir, també, intervenir en alguna fase del cicle o en el cicle complet. Un altre element a considerar com a font de diversitat en aqüicultura és el context geogràfic. Les grans dades de l’aqüicultura a escala mundial dibuixen una situació en la qual és difícil trobar-s’hi reflectit des de la Mediterrània, per exemple. Les diferències locals defineixen escenaris ben diversos pel que fa a espècies, sistemes, plantejament de l’aqüicultura que s’hi fa o rellevància en l’entorn local, entre d’altres. Les dades globals de l’aqüicultura (FAO, 2018) ens mostren una activitat que, a escala mundial, el 2017 va proporcionar el 53 % dels productes aqüícoles d’ús ali-
45
29/3/21 14:58
Lourdes Reig i Rosa Flos
mentari. Des de l’any 2014 la contribució de l’aqüicultura supera la de la pesca. Podem dir, per tant, que amb una activitat pesquera extractiva estabilitzada des de finals de la dècada dels vuitanta, l’aqüicultura ha tingut un paper fonamental proveint la meitat del subministrament de productes aquàtics per al consum humà. Encara a escala mundial, hi ha trenta-set països en què la producció aqüícola és superior a la de la pesca. Junts representen gairebé la meitat de la població mundial, la qual cosa dona idea de la importància de l’aqüicultura per al subministrament de proteïna animal de qualitat. És cert que els cinc majors productors pertanyen a Àsia (Xina, Índia, Indonèsia, Vietnam i Bangladesh), i això ens fa pensar en sistemes de cultiu i espècies força allunyades de la nostra cultura. En aquests principals països productors hi trobarem una aqüicultura molt diferent de la que nosaltres coneixem, on la producció en aigua dolça és majoritària, molt sovint emprant sistemes extensius, és a dir sense alimentació externa, d’espècies locals i, amb freqüència, en sistemes combinats amb diverses formes d’agricultura o ramaderia. Per comprendre la dificultat d’identificar les espècies que es produeixen en entorns geogràfics tan diversos, és interessant conèixer la dada que ens proporciona la FAO sobre el nombre dels anomenats species items produïts. El concepte species item s’utilitza a efectes estadístics i fa referència bé a una sola espècie, bé a un grup d’espècies (on no és possible identificar el nivell d’espècie) o a un híbrid interespecífic. L’any 2016 es van registrar un total de 598 species items, que inclouen 369 peixos (incloent 5 híbrids), 109 mol·luscs, 64 crustacis, 7 amfibis i rèptils (excloent-hi caimans o cocodrils), 9 invertebrats aquàtics i 40 algues aquàtiques. La FAO exclou d’aquesta llista altres espècies produïdes per ser emprades com a models biològics per a la recerca (com el peix zebra, per exemple), conreades com a aliment viu per als estats larvals d’espècies de cultiu o espècies ornamentals produïdes en captivitat. La producció de fitoplàncton tampoc queda ben recollida a les dades de la FAO. És interessant puntualitzar el que això implica i és que la FAO analitza, fonamentalment, l’aqüicultura que va destinada al consum humà directe, obviant altres destins que avui són una realitat com és la biotecnologia, la industria biomèdica i nutracèutica o la cosmètica, entre d’altres. I què entenem per aqüicultura a casa nostra? A Catalunya l’aqüicultura està basada en
46
Revista TSCB 70.indd 46
la producció d’espècies aquàtiques per al consum humà. L’aqüicultura marina, incloent peixos i mol·luscs bivalves, al 2017 va tenir un pes del 70,8 % sobre el volum total de producció aqüícola (unes set mil cinc-centes tones produïdes entre espècies marines i d’aigua dolça) amb un valor que representa el 73,8 % del valor econòmic total, d’acord amb les dades aportades per la Direcció General de Pesca i Afers Marítims. És una aqüicultura que es desenvolupa sobretot en gàbies al mar, en el cas dels peixos, i en instal·lacions situades a les badies del delta de l’Ebre, en el cas del mol·luscs. Les espècies que inclou són relativament limitades. L’orada i el llobarro són les espècies més produïdes si considerem només la producció en cicle complet, però la tonyina s’imposa com a principal producte si considerem només l’engreix. El musclo representa gairebé el 92 % de la producció de mol·luscs bivalves, amb quantitats molt menors d’ostra arrissada (8 %) i produccions testimonials de cloïssa, canyut i catxel (https://www.fepromodel.com). En conjunt, la combinació de tots els elements que diferencien els diversos models productius (espècies, medi, sistemes, finalitats) fa de l’aqüicultura una activitat força complexa i alhora fa que parlar-ne de forma simplificada ens pugui conduir a grans errors conceptuals. Aquesta circumstància no ajuda a la seva comprensió ni a la seva comunicació, especialment en entorns no qualificats o amb públics no experts. Les generalitzacions que s’han fet des de fora del sector, o fins i tot des del sector mateix, barrejant sistemes amb enfocaments i graus de maduresa completament diferents, han contribuït a la confusió al voltant de l’aqüicultura, la qualitat dels seus productes i el paper econòmic, social i ambiental que té.
Què en sap la societat, del peix que menja? Les dades dels volums de peix comercialitzats als nostres mercats mostren que la predominança de l’aqüicultura és una evidència en algunes espècies. Més del 80 % de l’orada i el llobarro que es van comercialitzar a Mercabarna al 2018 procedien de l’aqüicultura. De fet, una quarta part de tot el peix fresc que s’hi va vendre el mateix any eren peixos procedents de cultiu (orada, llobarro, salmó, turbot, truita, corball, bacallà) i més del 60 % del marisc fresc (musclo, ostra, cloïssa) també. Així, podem dir que els productes de l’aqüicultura estan completament incorporats a la nostra cistella de la compra.
Malgrat la penetració dels productes de l’aqüicultura en els nostres mercats hi ha consumidors que ignoren l’origen del peix que estan menjant. En algunes enquestes, en demanar als participants si menjaven peix de cria, la resposta fou rotunda, no, i a la pregunta de quins peixos menjaven varen dir: salmó, orada, musclos i ostres, tots ells procedents de l’aqüicultura. Aquesta anècdota ens ajuda a explicar una realitat: sovint els consumidors no saben quin és l’origen dels productes que consumeix o no s’aturen a pensar-hi. En el cas dels productes de l’aqüicultura, sabem com és en realitat el peix criat? Quin és el procés seguit i quins són els estàndards de producció? En quina mesura el que sabem de l’aqüicultura ho suposem pel que coneixem o imaginem de produccions ramaderes terrestres? Alguns estudis demostren que l’opinió sobre els productes de l’aqüicultura sovint es conforma a través de suposicions que es transmeten al llarg del temps i de visions negatives, de vegades extrapolades d’altres produccions animals terrestres (Vanhonacker et al., 2011; Verbeke et al., 2007b). En els últims anys s’està donant una intensa activitat de recerca al voltant de la seva acceptació social, ja que es considera que la manca de valoració per part dels consumidors pot ser un possible coll d’ampolla per al ple desenvolupament del sector (Alexander et al., 2016; Kaiser i Stead, 2002). Els nombrosos estudis duts a terme per determinar l’opinió dels consumidors sobre l’aqüicultura han partit d’enfocaments ben diversos i els resultats també ho són. Però podem començar amb una generalització. Podem dir que, en termes generals, es considera que allò que és natural és que el peix sigui de pesca. En concret al nostre país, la pesca és considerada l’activitat tradicional, coneguda, que forma part del nostre patrimoni cultural i del nostre paisatge. En aquest context, l’aqüicultura sembla que arriba per prendre un lloc que ja està ocupat. Amb certes excepcions, com pot ser la Xina, on l’aqüicultura és una activitat tradicional des de fa segles, la producció aqüícola es veu com una intrusió. En molts entorns es manté la percepció que l’aqüicultura està ocupant un espai que no li pertoca, i això constitueix una primera barrera per a la seva acceptació. Aquesta situació es fa evident en els molts treballs que comparen la percepció del peix de pesca respecte de la del peix de cultiu, atesa la repetició, no única però sí força singular, de coexistència dels dos productes en els nostres mercats (Claret et al., 2016, 2014;
Treballs de la Societat Catalana de Biologia, 70: 45-50
29/3/21 14:58
Dels mites a la realitat: com comunicar l’aqüicultura
Fernández-Polanco i Luna, 2010; Rickertsen et al., 2017; Verbeke et al., 2007a, entre d’altres). Altres estudis analitzen de forma més específica algunes qüestions concretes d’aquesta comparació, com les característiques sensorials (Farmer et al., 2000; Kole et al., 2009), la sostenibilitat i la producció orgànica (Whitmarsh i Palmieri, 2011), el benestar dels peixos (Feucht i Zander, 2015) o la importància del país d’origen i el mètode de producció (Claret et al., 2012). Els estudis són tants i tan heterogenis en els seus objectius, enfocaments i resultats que resulta difícil extreure’n una única conclusió quan, a més, hi hem d’afegir diferències importants tant en cultura de peix com en valors ètics. En una visió a l’engròs, sembla que els consumidors tendeixen a preferir el producte de pesca per sabor i qualitat i el de cultiu per conveniència (preu, disponibilitat) i, cada cop més, pels aspectes mediambientals. Tot i que la realitat, a vegades, dona resultats diferents. De fet, en diversos tasts a cegues (Claret et al., 2016; Kole et al., 2009) els enquestats no només no eren capaços de diferenciar els orígens, sinó que molts preferien el producte criat que, sovint, conté més greix i, per tant, ofereix una bona palatabilitat. Hi ha diversos treballs duts a terme a Catalunya que ens permeten entendre millor les percepcions a casa nostra. Bacher et al. (2014) van analitzar l’opinió de diversos col·lectius: científics, sector aqüícola, Administració, organitzacions no governamentals (ONG) ambientalistes i pescadors, tots ells amb una possible influència en els consumidors. Defineixen diversos perfils, que varien pel que fa al nivell d’importància atorgat a l’impacte ambiental i als beneficis socioeconòmics de l’activitat aqüícola. Les ONG i el sector productiu es concentren al voltant d’opinions força homogènies, però dins els col·lectius de científics, l’Administració i els pescadors hi ha diversitat d’opinions. Els aspectes de menys consens són els relacionats amb el possible impacte ambiental. Els de més consens, la necessitat de produir més qualitat que quantitat, la idea que cal transmetre millor la informació sobre la qualitat dels productes de l’aqüicultura i la necessitat de potenciar les certificacions de qualitat. L’estudi és molt més complet, però la seva importància resideix en el fet de mostrar com dins i entre els col·lectius que tenen un nivell de coneixement expert i que podrien tenir una influència en la decisió de compra dels consumidors hi ha visions ben diferents i sovint en sentits contraris.
Com veiem en aquest estudi, la manca d’informació sobre l’aqüicultura concentra un important consens. Aquesta idea es referma en el treball de Claret et al. (2012), fet també a Catalunya. Els consumidors declaren que la seva decisió de compra es basa en la qualitat del producte i cerquen la informació demanant consell a qui els atén a la peixateria, fet que caracteritza encara la compra de peix respecte la d’altres productes alimentaris en què no es busca la prescripció per part del professional. Amb la idea de comprendre el paper de peixaters i majoristes en la percepció que els consumidors poden tenir sobre l’aqüicultura, s’ha dut a terme el projecte de transferència VALORA, titulat «Anàlisi de la percepció del producte de l’aqüicultura com a eina de valorització del sector», liderat per les autores d’aquest article i finançat per la Xarxa de Referència en R+D+I en Aqüicultura (XRAq). L’objectiu era determinar de forma qualitativa les percepcions positives i negatives sobre l’aqüicultura per part de consumidors, minoristes i majoristes. La manca d’informació i coneixement sobre l’aqüicultura destaca com el principal aspecte negatiu que tots ells atribueixen als productes aqüícoles. Altres autors han identificat el mateix dèficit de coneixements sobre el tema en altres països (Feucht i Zander, 2015; Pieniak et al., 2007, 2013; Vanhonacker et al., 2011; Verbeke et al., 2007a). En el projecte VALORA s’identifica un fort consens al llarg de la cadena de valor en aspectes de mercat i qualitat, i es considera que els productes d’aqüicultura són convenients i saludables, però que haurien de millorar la seva qualitat, tot i tenir un sabor acceptable. Els temes ètics relacionats amb el medi i el benestar animal no sembla que siguin preocupacions importants. Volem insistir en el consens al voltant de la manca d’informació, que els participants arriben a identificar com un possible obstacle per a l’acceptabilitat social de l’aqüicultura, ja que difícilment es pot confiar en el que es desconeix. Com veiem l’opinió de cada col·lectiu està molt marcada per la seva pròpia experiència, context i interessos, però també és cert que la informació des del món de l’aqüicultura no sempre ha estat ben orientada i potser no ha proveït informació útil perquè els consumidors poguessin prendre decisions de compra i consum.
Mites que, potser, encara perduren Quin ha estat el paper del sector mateix i dels agents relacionats amb l’aqüicultura? Què ha Treballs de la Societat Catalana de Biologia, 70: 45-50
Revista TSCB 70.indd 47
passat doncs perquè, en alguns entorns, segueixi estesa la idea que l’aqüicultura és perjudicial o no és tan bona? Segurament ens podríem remuntar a força anys enrere quan es va començar a fer evident que existien certs mites sobre l’aqüicultura. Es podien trobar en pàgines web prestigioses, com la de la NOAA (National Oceanic and Atmospheric Administration) dels EUA, un del llocs on van aparèixer per primera vegada els «deu mites» en aqüicultura. Es descrivien totes les opinions existents en contra de la producció aqüícola, els mites, i es rebatien un per un. Cada mite quedava discutit però la llavor del dubte ja s’havia plantat. Per què es va fer aquest enfocament negatiu i a la defensiva? Possiblement no hi ha cap altre sector que intenti presentar els seus productes i augmentar-ne el consum començant per donar veu a les visions negatives que els amenacen. No analitzarem aquí els mites per no caure en l’error que critiquem. La mateixa NOAA un temps després va canviar l’enfocament, el concepte de mites va desaparèixer i les visions negatives també (https:// www.noaa.gov/stories/what-is-aquaculture). Però encara avui, en l’àmbit europeu, la campanya «Farmed in the UE», que pretén promoure els productes europeus, utilitza l’enfocament que la NOAA va utilitzar i descartar. La campanya explica l’aqüicultura des dels defectes que hi troben els seus detractors, el que sens dubte condiciona els lectors. Mai no podrem saber fins a quin punt una part de la imatge negativa de l’aqüicultura, que encara avui persisteix, va ser alimentada des d’una visió errònia, a la defensiva, del mateix sector. Ens podem preguntar per què van sorgir els mites i si hi havia una altra manera d’enfocar el tema. És cert que l’aqüicultura ha hagut de progressar des de plantejaments científics i tecnològics incomplets, equivocats o fins i tot inexistents en certs temes, i ha hagut d’aprendre com produir oferint qualitat i sostenibilitat alhora, com passa a qualsevol sector que «aprèn» a produir. Avui cal emfatitzar l’evolució que ha fet el sector, l’enorme volum de coneixement científic que s’ha generat sobre les espècies en cultiu i els seus requeriments, i l’eficàcia amb què aquest coneixement s’ha traduït en una producció optimitzada i respectuosa amb el medi i el benestar animal. El paper del sector mateix ha estat decisiu ja que s’ha autoimposat normes d’actuació i codis de conducta, seguint els protocols generats per la FAO en la dècada dels noranta, i aplicant sistemes d’assegurament i certificacions de qualitat.
47
29/3/21 14:58
Lourdes Reig i Rosa Flos
Per sort, hi ha també exemples d’altres enfocaments ben diferents, com és el cas del salmó, un peix que té una bona acceptació als nostres mercats i una excel·lent imatge com a producte de qualitat, procedent sobretot del nord d’Europa. Aquest peix, el consum del qual està ben consolidat a les nostres llars, va rebre un fort suport amb una intensa campanya d’imatge, promoguda per les autoritats noruegues, emfatitzant la qualitat de les aigües en què viuen, marcant cada exemplar amb una bandera que n’identificava l’origen i acompanyant-ho amb exemples de receptes atractives. Òbviament la campanya noruega no començava parlant de la contaminació generada pels cultius marins en els fiords temps enrere. Avui ja són molts els consumidors que valoren positivament els peixos criats, per l’estabilitat de la seva qualitat i el seu bon preu, per la seva disponibilitat durant tot l’any, per la garantia de seguretat que implica que estiguin controlats durant tot el cicle de producció, el que dona lloc a una bona i saludable composició i a la possibilitat de traçabilitat. Són consumidors que, a més, són sensibles al fet que la sostenibilitat s’hagi convertit en un eix bàsic d’aquesta indústria. Però queda molta feina per fer.
Com s’està explicant avui l’aqüicultura? El paper de les certificacions i les campanyes Un dels punts més crítics és el punt de venda, on la informació sobre l’aqüicultura hauria de ser més clara ja que és aquest el moment en què els consumidors necessiten informació per prendre una decisió de compra. Tal com indicàvem a l’inici de l’article, ni tan sols per als consumidors amb un nivell mitjà de formació resulta fàcil identificar l’origen dels productes pesquers en el moment de comprar peix. Quan parlem d’origen no ens referim només a procedència geogràfica sinó al sistema de pesca o cultiu amb què ha estat obtingut. Diferenciar si procedeixen de captura o de cultiu hauria de ser senzill, si la normativa d’etiquetatge s’apliqués sempre de manera correcta. Més enllà d’això, ja parlant dels productes de cultiu, comprendre el sistema productiu del qual procedeix i les implicacions que aquest sistema pot tenir pel que fa a la qualitat del peix, al medi o al benestar animal, és força més complicat. Una eina que s’ha anat estenent és la de la certificació, els anomenats labels, per informar els consumidors sobre l’origen i les implicacions d’un determinat producte i, així, ajudar en la presa de decisions en el punt de compra.
48
Revista TSCB 70.indd 48
Taula 1. Algunes de les certificacions rellevants en pesca i aqüicultura Denominació
Organització
Productes
Objectiu
MSC
Marine Stewardship Council
Pesca
Avalua si una pesqueria està ben gestionada i és sostenible.
ASC
Aquaculture Stewardship Council
Aqüicultura
S’atorga als sistemes de cultiu que garanteixen la sostenibilitat i la responsabilitat social.
GAA
Global Aquaculture Alliance
Aqüicultura
S’atorga a les instal·lacions que funcionen de manera responsable, ambientalment, socialment i econòmicament.
Naturland
Naturland
Aqüicultura
És una certificació de producció ecològica, que inclou el benestar animal i el medi ambient, així com aspectes socials.
Crianza de nuestros mares
Asociación de Productores Marinos (APROMAR)
Aqüicultura
És una certificació per a orada, llobarro i corbina criades a les nostres costes, com a garantia de proximitat i frescor.
Aquesta ha estat una tendència creixent en l’àmbit europeu i, com a resultat, avui, la diversitat de certificacions existents torna a ser un maldecap per als consumidors que les volen utilitzar. Diverses organitzacions han creat labels específics que s’aconsegueixen quan es compleix el plec de normes establert per cada organització (vegeu la taula 1). La realitat és que les certificacions o els etiquetatges específics rarament arriben fins al punt de venda i, en cas que hi arribin, requereixen que els consumidors coneguin i comprenguin el significat de cada label per saber què estan comprant i què els garanteix cadascuna de les certificacions. En aquest punt, el paper dels minoristes com a prescriptors podria ser molt important, sempre que disposin de la informació que han de transmetre als consumidors. Una altra via per donar a conèixer els productes de l’aqüicultura són les campanyes específiques. En l’àmbit europeu la campanya més recent i global és «Farmed in the EU», esmentada anteriorment, amb l’objectiu de posar en valor els productes de l’aqüicultura europea. A banda de fer promoció dels avantatges de menjar peix per a la salut, es promouen els productes de l’aqüicultura europea com una forma de donar suport a les economies locals, ja que només el 32 % del peix i marisc que es consumeix a Europa és local. S’emfatitza la legislació vigent a la Unió Europea com a garant per a la disponibilitat de productes de qualitat, saludables i sostenibles. La campanya ha implicat la comunitat científica, que ha contribuït a explicar l’aqüicultura a les escoles. Allà on ha arribat ha tingut èxit i ha transmès la idea entre els nois i noies que el peix de cultiu és producte d’una feina acurada i respectuosa amb el medi, dirigida a fer que ells i elles puguin tenir una alimentació segura i saludable. Però la repercussió ha estat feble. APROMAR ha acompanyat el segell «Crianza
de nuestros mares» amb una campanya als mitjans de comunicació emfatitzant l’origen local del peix i la seva màxima frescor, amb la idea que com més a prop, més fresc. Però la campanya, un cop més, ha tingut una repercussió escassa. Recentment el Ministeri d'Agricultura, Pesca i Alimentació va llançar una campanya per promoure el consum de peix de pesca i cultiu. La campanya resulta interessant per com emfatitza els beneficis associats al consum de peix sense diferenciar entre els dos orígens. Vistes les campanyes específiques des de l’aqüicultura i la seva baixa repercussió, la pregunta podria ser: on cerquen la informació sobre peix els consumidors espanyols? Un altre projecte de transferència del nostre grup, finançat per la XRAq, i que portava per títol «Valorització de l’aqüicultura a través d’una comunicació efectiva» (VALE+) va intentar trobar algunes respostes. Enquestada una mostra de tres-centes persones consumidores habituals de peix d’entre vint i setanta anys, i com a resposta a la pregunta sobre la seva font d’informació sobre productes pesquers, vàrem determinar que per a un 70 % dels enquestats el principal proveïdor d’informació és el personal que atén a la peixateria, coincidint amb Claret et al. (2012). La segona font entre les diverses que pot consultar cada persona és l’etiquetatge o les certificacions (64 %) i després la premsa escrita (41 %). Internet (33 %), la televisió (32 %) i la família i els amics (19 %) tenen una rellevància inferior. Veiem que la tercera via més emprada per obtenir informació sobre l’aqüicultura és la premsa escrita, impresa o digital, però els treballs que analitzen la presència de l’aqüicultura en la premsa escrita no són gaire abundants (Bacher, 2015; Feucht i Zander, 2016; Reig et al., 2016; Schlag, 2011). A Espanya, els resultats coincideixen a destacar que les notícies presents en la premsa escrita tracten sobretot
Treballs de la Societat Catalana de Biologia, 70: 45-50
29/3/21 14:58
Dels mites a la realitat: com comunicar l’aqüicultura
els aspectes socioeconòmics de l’aqüicultura i ho fan amb un enfocament positiu (Branco, 2011; Reig et al., 2016). Podem dir que tracten l’aqüicultura com a sector econòmic, i posen el focus en la situació de les seves empreses, però la informació sobre els productes de l’aqüicultura és escassa. En qualsevol cas, la freqüència de notícies sobre aqüicultura és baixa. Branco reporta una mitjana a Espanya d’una notícia cada dos dies, notícies que apareixen sobretot en mitjans regionals, en àrees on l’aqüicultura té més rellevància social, com és el cas de Galícia. En resum, el que podem concloure és que la premsa escrita no és el lloc on els consumidors poden trobar informació sobre temes que podrien ser del seu interès, com aspectes de qualitat i valor nutricional dels productes aqüícoles, o bé sobre temes que relacionin l’aqüicultura amb els mercats, el medi o el benestar animal.
Com es pot comunicar als consumidors els avantatges de l’aqüicultura? L’aqüicultura és, ja avui, una via imprescindible per proveir el subministrament de peix que la humanitat necessita, ja no en països amb deficiències alimentàries, on és determinant per garantir l’accés a proteïna animal de qualitat, sinó en països com el nostre, on és proveïdora de productes que volem i necessitem a les nostres llars. Per tant, l’aqüicultura ha de guanyar-se la confiança dels consumidors, que l’haurien d’incorporar amb plena naturalitat als seus hàbits de consum. Aquesta normalització no ha d’anar en detriment del consum de productes procedents de la pesca extractiva, ja que els dos orígens poden complementar-se i han de trobar el seu públic i la circumstància més adequada per al consum de cadascun. Per arribar a aquesta situació desitjada és imprescindible millorar la manera com estem comunicant l’aqüicultura. Un pla de comunicació complet hauria d’incloure els continguts que s’han de comunicar, qui ho ha de liderar, el moment més adequat i, finalment, com s’ha de fer aquesta comunicació. Els continguts a comunicar, d’acord amb el que demostren els estudis sobre la percepció dels consumidors, han de ser específics per al perfil de públic que es pretén atendre. Cal conèixer de forma exhaustiva el públic
objectiu, els seus hàbits de consum, la seva escala de valors i prioritats, comprendre per quins atributs està disposat a pagar i definir un missatge que respongui realment als seus dubtes i interessos. Les dades oficials de consum a Espanya (MAPAMA, 2017) ens diuen que la despesa en alimentació augmenta i que cada cop és més gran el percentatge de consumidors disposats a pagar per aliments sostenibles, però al mateix temps la despesa en productes pesquers baixa. Per tant, a casa nostra tenim un repte. Hi ha un hàbit de consum de peix ben consolidat, però que s’ha estancat en els últims anys, al contrari del que està passant a altres països del nostre entorn. Cal entendre que la complexitat al voltant de la compra i el consum en el cas del peix és més gran que en altres aliments. Sovint els consumidors expressen dificultats tant per adquirir-lo, per por a no saber determinar-ne la frescor, com per cuinar-lo (Birch i Lawley, 2012). Per això, cal posar un èmfasi especial en els ben coneguts beneficis per a la salut i facilitar-ne la compra i la preparació. Tanmateix, la sostenibilitat de la seva obtenció pot ser un interessant argument de comunicació, considerant la baixa petjada de carboni d’aquest sistema en comparació amb altres sistemes de producció de proteïna animal. L’aqüicultura té arguments propis que haurien de permetre sortir de la contínua comparació amb el producte de la pesca, que no beneficia a ningú, ja que cada origen té els seus propis atributs. En el producte de cultiu podem parlar de disponibilitat, de preu, de traçabilitat i de seguretat sanitària, entre d’altres. A més, s’hauria de poder diferenciar millor entre les diverses formes de producció i el que aporta cadascuna d’elles. Sigui quin sigui el contingut que es decideixi promoure, el lideratge ha de partir del sector productiu amb un missatge positiu i proactiu, corregint una tendència que ha durat massa temps: la de comunicar l’aqüicultura des d’una posició defensiva i reactiva. El focus final del missatge s’ha de posar en els consumidors i, de forma òptima, el moment més adequat per a la comunicació ha de ser el moment de la compra. Perquè això passi, reiterem que els minoristes són una peça clau per liderar la comunicació i transmetre els avantatges de l’aqüicultura. Per tant, cal
Treballs de la Societat Catalana de Biologia, 70: 45-50
Revista TSCB 70.indd 49
fer un esforç també en l’àmbit dels minoristes. Hem de poder estar segurs que aquest sector coneix bé els productes de l’aqüicultura i els seus avantatges i que està preparat per fer una prescripció adequada i disposat a fer-la. Aquí és on ha d’entrar en joc la comunitat científica, entre d’altres col·lectius. Tant Bacher (2015) com els resultats del projecte VALE+ indiquen que la comunitat científica gaudeix d’un alt grau de confiança quan es tracta de rebre informació sobre el peix i l’aqüicultura, així com els professionals de la salut i les associacions de consumidors. Aquests serien els col·lectius que caldria implicar per construir informació que sigui sòlida científicament però comprensible i amable per als consumidors mitjans. La forma que ha de prendre la comunicació requereix una comprensió exhaustiva de com el públic rep la informació sobre els productes pesquers i de l’aqüicultura. Comparant peix de pesca i cultiu en tasts a cegues, Claret et al. (2016) varen determinar que la informació rebuda sobre el peix modificava la seva avaluació hedònica, de tal manera que els enquestats preferien el peix de cultiu quan n’ignoraven l’origen i el de pesca quan eren informats sobre la seva procedència. Així, cal definir una estratègia completa de comunicació per encertar el què, el qui, el com i el quan per assolir els objectius desitjats. Aquesta estratègia implica comprendre els mecanismes que utilitza la comunicació avui en dia. Ens trobem davant d’un escenari de canvi tant per a l’aqüicultura com per a la comunicació. L’aqüicultura necessita millorar la seva comunicació per consolidar-se, en un moment en què la comunicació està canviant a una velocitat vertiginosa. Hem de ser conscients d’aquest context difícil i creiem que l’única manera d’afrontar-lo és a partir d’un treball cooperatiu entre el sector productiu, que coneix les característiques dels productes, la comunitat científica, que disposa dels coneixements necessaris, i els i les professionals de la comunicació, que dominen les eines que cal emprar. L’esforç fet fins avui des del sector de l’aqüicultura, des de l’acadèmia i l’Administració, i l’evolució aconseguida, són un punt de partida excel·lent des del qual podem explicar la contribució de l’aqüicultura a la nostra alimentació i a la qualitat de vida en la nostra societat.
49
29/3/21 14:58
Lourdes Reig i Rosa Flos
Bibliografia Alexander, K. A. [et al.] (2016). «Improving sustainability of aquaculture in Europe: Stakeholder dialogues on integrated multi-trophic aquaculture (IMTA)». Environ. Sci. Policy, 55: 96-106. Bacher, K. (2015). «Perceptions and misconceptions of aquaculture». Globefish Res. Program., 120: 1-35. Bacher, K. [et al.] (2014). «Stakeholders’ perceptions of marine fish farming in Catalonia (Spain): A Q-methodology approach». Aquaculture, 424-425: 78-85. Birch, D.; Lawley, M. (2012). Buying seafood: Understanding barriers to purchase across consumption segments. Food Qual. Prefer., 26: 12-21. Branco, J. (2011). La acuicultura en la prensa española 2005-2011. Madrid: Fundación Observatorio Español de Acuicultura. Claret, A. [et al.] (2012). «Consumer preferences for sea fish using conjoint analysis: Exploratory study of the importance of country of origin, obtaining method, storage conditions and purchasing price». Food Qual. Prefer., 26: 259-266. — (2014). Consumer beliefs regarding farmed versus wild fish. Appetite, 79: 25-31. — (2016). «Does information affect consumer liking of farmed and wild fish?». Aquaculture, 454: 157-162. FAO (Food and Agriculture Organization of the United Nations) (2018). The State of World Fisheries and Aquaculture 2018: Meeting the sustainable development goals. Roma: FAO.
50
Revista TSCB 70.indd 50
Farmer, L. J. [et al.] (2000). «Sensory characteristics of farmed and wild Atlantic salmon». Aquaculture, 187: 105-125. Fernández-Polanco, J.; Luna, L. (2010). «Analysis of perceptions of quality of wild and cultured seabream in Spain». Aquac. Econ. Manag., 14: 43-62. Feucht, Y.; Zander, K. (2015). «Of earth ponds, flowthrough and closed recirculation systems – German consumers’ understanding of sustainable aquaculture and its communication». Aquaculture, 438: 151-158. — (2017). «Aquaculture in the German print media». Aquac. Int., 25: 177-195. Kaiser, M.; Stead, S. M. (2002). «Uncertainties and values in European aquaculture: Communication, management and policy issues in times of “changing public perceptions”». Aquac. Int., 10: 469-490. Kole, A. P. W. [et al.] (2009). «The effects of different types of product information on the consumer product evaluation for fresh cod in real life settings». Food Qual. Prefer., 20: 187-194. MAPAMA (Ministerio de Agricultura y Pesca, Alimentación y Medio Ambiente) (2017). Informe del consumo de alimentación en España 2016. Madrid: MAPAMA. Pieniak, Z. [et al.] (2007). «European consumers’ use of and trust in information sources about fish». Food Qual. Prefer., 18: 1050-1063. — (2013). «Consumer knowledge and use of information about fish and aquaculture». Food Policy, 40: 25-30.
Reig, L. [et al.] (2016). «Aquaculture image as seen by the media in the Spanish written and digital press in the recent years». A: European Aquaculture Society Conference. «AE2016». Edimburg: Aquaculture Society, 834-835. Rickertsen, K. [et al.] (2017). «French consumers’ attitudes and preferences toward wild and farmed fish». Mar. Resour. Econ., 32: 59-81. Schlag, A. K. (2011). «Aquaculture in Europe: Media representations as a proxy for public opinion». Int. J. Fish. Aquac., 3: 158-165. Solberg, M. F. [et al.] (2015). «Are farmed salmon more prone to risk than wild salmon? Susceptibility of juvenile farm, hybrid and wild Atlantic salmon Salmo sa lar L. to an artificial predator». Appl. Anim. Behav. Sci., 162: 67-80. Vanhonacker, F. [et al.] (2011). «Does fish origin matter to European consumers? Insights from a consumer survey in Belgium, Norway and Spain.» Br. Food J., 113: 535-549. Verbeke, W. [et al.] (2007a). «Consumer perception versus scientific evidence of farmed and wild fish: Exploratory insights from Belgium». Aquac. Int., 15: 121-136. — (2007b). «Perceived importance of sustainability and ethics related to fish: A consumer behavior perspective». Ambio, 36: 580-585. Whitmarsh, D.; Palmieri, M. G. (2011). «Consumer behaviour and environmental preferences: A case study of Scottish salmon aquaculture». Aquac. Res., 42: 142-147.
Treballs de la Societat Catalana de Biologia, 70: 45-50
29/3/21 14:58
Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans Rafael Sardá,1 Juan Ramis2 i Luis Francisco Ruiz-Orejón1 1 2
DOI: 10.2436/20.1501.02.192
Centre d’Estudis Avançats de Blanes (CEAB-CSIC) ESADE Business School
ISSN (ed. impresa): 0212-3037 ISSN (ed. digital): 2013-9802
Correspondència: Rafael Sardà. Centre d’Estudis Avançats de Blanes (CEAB-CSIC). Carrer d’accés a la cala St. Francesc, 14. 17300 Blanes (Girona)
http://revistes.iec.cat/index.php/TSCB Rebut: 24/05/2019 Acceptat: 12/06/2019
Resum Segons estimes recents, entre set i divuit milions de tones de plàstics podrien entrar als mars i oceans aquest any (segurament més si fem altres suposicions). D’aquests materials, entre el 70 % i el 95 % acabaran en els fons i la resta arribarà a les nostres costes o es fragmentarà en partícules de meso-, microi nanoplàstic que suraran pels mars o entraran a les seves cadenes tròfiques. Nosaltres els hem creat, depenem d’ells i ara hem descobert que també són un problema. Un problema que al segle xxi apareix, com tantes altres problemàtiques ambientals, de forma global (són desplaçats pels corrents independentment del seu origen), persistent (els farem servir un minut, però seran escombraries per una centúria o més) i incert (només estem començant a visualitzar les seves primeres problemàtiques… i ja són molt serioses). En el present treball, a partir d’unes expedicions realitzades pel mar Mediterrani (les campanyes del NIXE III) parlarem d’aquesta problemàtica, de com aquests materials afecten els nostres mars i oceans, quins serveis dels ecosistemes marins es veuen afectats i quines respostes hem de començar a plantejar-nos com a societat civil.
Paraules clau: plàstics, microplàstics, DPSWR, Mediterrani.
Now you see it… The problem of floating plastics in our seas and oceans Summary According to estimates, between 7 and 18 million tonnes of plastic could enter the seas and oceans of our planet this year (and probably even more if we make other assumptions). Between 70 and 95 % of this material will sink to the bottom and the rest will reach our coasts or become fragmented and end up in meso-, micro- and nano-plastic particles which will float about our seas or enter their food chains. We have created plastics, we depend on them, and now we have discovered that they are also a problem for us. In the 21st century, like so many other environmental issues, it is a problem that is global (particles will be mobilized by currents regardless of their origin), persistent (we may use them for only one minute, but they will remain as rubbish for a century or more), and uncertain (we are only starting to realise some of the problems that this entails but these problems are already quite serious). In this paper, basing ourselves on data from the NIXE III Project carried out in the Mediterranean, we will discuss the problem of plastics and what impact these materials have on our seas, which marine ecosystem services are affected, and which responses we must consider as a civil society.
Keywords: plastics, microplastics, DPSWR, Mediterranean Sea.
Fa cent anys, l’arxiduc Ludwig Salvator d’Àustria (1847-1915) va explorar la Mediterrània amb el seu vaixell de vapor, el Nixe II, d’oest a est i de nord a sud. Durant aquestes expedicions, va centrar l’atenció en petites i desconegudes regions i illes d’aquest mar. L’arxiduc va ser considerat un investigador i cronista del mar Mediterrani, una vida apassionada en un món que semblava que tenia uns recursos il·limitats. L’arxiduc va desenvolupar tot un conjunt de monografies, més de sis mil pàgines impreses que contenien descripcions d’animals, plantes, meteorologia, història, folklore, arquitectura, paisatge i explicacions detallades de la població, els seus costums, cançons i poemes. Per celebrar el centenari de la mort de l’arxiduc, la Fundació Innovació, Acció i Coneixement de les illes Balears va iniciar el projecte Nixe III el 2010: l’objectiu principal era fer una comparativa entre les monografies de l’arxiduc realitzades cent anys enrere i nous documents obtinguts en revisar els llocs originals que l’arxiduc va visitar. El projecte Nixe III
va durar cinc anys i durant aquest temps es van dur a terme diverses campanyes per la Mediterrània. Atesos els llargs desplaçaments entre els llocs a descriure, es va pensar a mostrejar plàstics flotants a la Mediterrània; tenint en consideració que quan el Nixe II i l’arxiduc van navegar-hi no hi havia plàstics al mar. El projecte Nixe III va estudiar la situació dels plàstics flotants des d’un punt de vista socioecològic. El projecte (2010-2015) va analitzar la situació d’aquestes deixalles (plàstics flotants) a tres escales: a) a gran escala, mostrejant la Mediterrània occidental i central, b) a escala regional, treballant les zones costaneres de les illes Balears, i c) a escala local, mitjançant l’estudi estacional de la seva presència al canal de Menorca. Durant els mostrejos realitzats, mitjançant una xarxa d’arrossegament coneguda com a manta per la seva particular forma (manta trawl), no es va obtenir cap mostra on no es trobessin restes de fragments plàstics (Ruiz-Orejón et al., 2016; 2018; 2019). El 97 % de tot el material obtingut amb origen no natural varen Treballs de la Societat Catalana de Biologia, 70: 51-59
Revista TSCB 70.indd 51
ser plàstics, amb un clar predomini dels microplàstics, i les partícules més abundants tenien al voltant d’1 mm² de superfície (malla de mostreig utilitzada: 333 μm). Es va fer també un estudi sobre les percepcions, actituds i comportament de les persones i grups d’activitat de l’illa de Mallorca (Ruiz-Orejón, 2018). A escala mediterrània (2011 i 2013) es van estudiar un total de setanta-una mostres. Es va estimar una mitjana de 579,3 g de pes sec per km2 (en endavant, ps km-2) (màxim: 9.298,2 g ps km-2) i una concentració mitjana de partícules de 147.500 peces de plàstic per km2 (en endavant, pt km-2) (màxima: 1.164.403 pt km-2) (vegeu la figura 1). Segons estimes fetes amb aquestes dades, la Mediterrània acumularia en l’actualitat unes mil cinc-centes tones de residus plàstics a la seva superfície. A escala balear, es van estudiar vint mostres (estiu de 2014) a les seves aigües costaneres (primers cinc quilòmetres de costa). Amb una elevada variabilitat, la concentració de partícules més alta (màxim: 4.576.115 pt km–2)
51
29/3/21 14:58
Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón
Figura 1. Concentracions de plàstic (gràfic superior: g ps km–2; gràfic inferior: pt km–2) de les mostres del projecte Nixe III (adaptat de RuizOrejón et al., 2016).
i el pes sec (màxim: 8.102,9 g ps km–2) es varen situar al nord del promontori de les illes. Amb dades d’aquest estudi, la concentració mitjana de pes va ser de 1.165,7 g ps km–2 i la concentració mitjana de partícules de 900.324 pt km–2, valors superiors als obtinguts en l’estudi anterior i que s’expliquen pel fet de ser mostres més properes a la costa, on aquests valors augmenten. Els elevats valors de concentració de plàstics a la costa N-NW d’Eivissa i Mallorca en ubicacions poc poblades suggereixen que la distribució de partícules de plàstic podria estar condicionada majoritàriament pels corrents oceanogràfics de la zona. Finalment, a una escala més local, es va obtenir un total de quaranta-vuit mostres trimestralment a l’àrea protegida del canal de Menorca. La finalitat d’aquest estudi era analitzar les possibles variacions estacionals i comprovar-ne la presència en una àrea marina protegida. Les dades obtingudes varen arribar fins a 2.016,7 g ps km–2 a l’estiu i 347.793 pt km–2
52
Revista TSCB 70.indd 52
a la primavera a la zona més propera a l’illa de Mallorca com a valors més elevats. Les dades semblaven indicar l’existència d’un patró d’acumulació i neteja que estaria relacionat amb la circulació d’aigües al canal. Els resultats del projecte Nixe III concorden amb els estudis internacionals que assenyalen que la presència de plàstics en els oceans és global. L’acumulació més gran de plàstics es va observar en les zones més costaneres i en àrees de circulació o de confluència de corrents (golf de Taranto, illes del Jònic i part de les illes Balears). Les acumulacions a la Mediterrània en zones de confluència de corrents constitueixen l’observació en un mar més petit d’un aspecte semblant a les grans acumulacions de residus que es donen en els grans girs de circulació oceànica conegudes com garbage patches, a les quals ens referirem més endavant (Moore et al., 2001; Kaiser, 2010). Els sistemes naturals són capaços de proveir les nostres societats amb recursos naturals
abundants; aquests sistemes naturals no es poden tractar com entitats discretes i analitzar-les per separat; depenen d’uns sistemes socials i econòmics amb els quals interactuen i per això molts autors comenten la necessitat que siguin analitzats tenint en compte els sistemes socioecològics dels quals formen part (Berkes i Folke, 1998). Aquests sistemes es poden analitzar a través de diverses plataformes d’informació. Recentment Cooper (2013) ha proposat el marc DPSWR (drivers, pressures, states, welfare, responses, en català forces motores, pressions, estat, benestar, respostes), un marc conceptual que utilitzarem a continuació. Els sistemes humans, les persones i les seves activitats, es converteixen en forces motores de canvi. Aquestes forces pressionen els sistemes naturals amb els quals es relacionen. Com a conseqüència, els sistemes naturals (les seves unitats estructurals i les seves funcions) poden alterar el seu estat, que finalment es pot traduir en la degradació dels recursos naturals fonamentals utilitzats per l’home (els serveis ecosistemics) i en la disminució, d’aquesta manera, del benestar humà. El reconeixement d’aquesta degradació hauria de permetre que l’home realitzés respostes polítiques adequades per resoldre el patró de degradació observat. Utilitzarem aquest marc conceptual per analitzar la problemàtica actual dels plàstics en mars i oceans.
La producció global de plàstics (forces motores) Els plàstics són una de les grans solucions de la civilització. Són versàtils, lleugers, duradors, hermètics, resistents, econòmics i flexibles, i tot això els ha fet estar presents en una enorme varietat de productes. Els plàstics ens acompanyen en la nostra vida diària i, per això, a mesura que la població augmenta (7.710 milions de persones al planeta, els últims mil milions arribats en els últims dotze anys) i que les activitats d’aquesta població també augmenten (88 milers de bilions de dòlars de producte interior brut global amb un increment del 2,9 % de mitjana anual des que hem creuat el mil·lenni), la producció de plàstic no para de créixer, per la qual cosa hem desenvolupat enormes
Treballs de la Societat Catalana de Biologia, 70: 51-59
29/3/21 14:58
Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans
Producció de plàstics (milions de tones anuals) 450 400 350 300 250 200 150 100 50 0 1930
1940
1950
1960
1970
1980
1990
2000
2010
2020
2030
Figura 2. Evolució de la producció mundial de plàstics (elaboració pròpia).
capacitats productives d’aquests materials (vegeu la figura 2). A partir dels anys cinquanta, es dispara el consum del plàstic en introduir-ne les aplicacions en els mercats de masses. La producció mundial de plàstics podria estar al voltant dels 400 milions de tones anuals (335 al 2017 segons PlasticEurope [2018] enfront dels 440 del 2015 segons Geyer et al. [2017]) amb una taxa de creixement anual del 8,5 % des de 1950 (produïm més de mil milions de quilograms al dia; ampolles de plàstic d’aigua a una velocitat de gairebé vint mil per segon; hem duplicat el tonatge de producció global de plàstic en menys de dues decades). L’extrapolació d’aquestes dades mitjançant un escenari business as usual és enorme. Gairebé la meitat dels materials de plàstic produïts pels humans fins a l’actualitat (8.300 milions de tones) han estat manufacturats en els darrers quinze anys i, d’aquests, 6.300 milions ja serien deixalles, la major part (el 60 %) en abocadors o dispersos pel medi natural. Si continuen les tendències actuals de producció i gestió de residus, al voltant de 12.000 milions de tones de residus plàstics aniran a l’abocador o a un entorn natural abans del 2050 (Geyer et al., 2017).
L’impacte sobre mars i oceans (pressions) Els mars i els oceans cobreixen el 70 % de la superfície de la Terra i actuen com a magatzem natural d’energia tèrmica i carboni. Els corrents oceànics redistribueixen energia i carboni i determinen d’aquesta manera la seva pro-
ductivitat i el clima del planeta. Aquesta circulació oceànica també és aprofitada pels éssers vius en els seus desplaçaments, i també per noves entitats de contaminació química i altres deixalles marines, entre les quals destaquen les partícules de plàstic. La major part d’aquestes deixalles no suren i solen acabar bé als fons abissals, bé a les costes i platges expulsades per l’onatge, la qual cosa dona lloc a problemes molt diversos. La quantitat de plàstic que entra anualment als mars i oceans és encara imprecisa i només s’ha abordat d’acord amb estimacions. Un grup d’investigadors americans (Jambeck et al., 2015) amb dades de 2010 van estimar la massa total de residus plàstics que entraven als mars i oceans cada any: entre 4,8 i 12,7 milions de tones (Eunomia [2016] situava aquest valor als 17 milions de tones). A partir de les dades de Jambeck et al. (2015) i els creixements observats en la indústria (8,5 % per any), podríem projectar les dades al present; entre 7 i 18 milions de tones de plàstics podrien haver entrat als oceans l’any 2019. Un treball recent de Schmidt et al. (2017) assenyalava que el 90 % del plàstic que contamina els nostres oceans podria vindre de només deu rius, vuit dels quals es troben a l’Àsia: Iangtsé, Indus, Groc, Hai He, Ganges, Perla, Amur, Mekong, i dos, a l’Àfrica: el Nil i el Níger. Les conques d’aquests rius tenen dues coses en comú: una població generalment alta, de vegades centenars de milions de persones, i un procés de gestió de residus bastant deficient. Treballs de la Societat Catalana de Biologia, 70: 51-59
Revista TSCB 70.indd 53
Una vegada al mar, els plàstics es fotodegraden amb l’exposició a la llum solar i es van descomponent en partícules durant llargs períodes de temps, degut també a la utilització industrial d’estabilitzadors addicionals com l’ús d’antioxidants (cinquanta anys per a una tassa de cafè, cinc-cents anys per a un aparell de pescar). A causa d’aquest patró, els plàstics es fragmenten en partícules cada vegada més petites, fins a arribar als anomenats microplàstics i nanoplàstics. Els prefixos nano-, micro-, meso- i macro- en relació amb la contaminació de plàstics estan encara poc definits. Els límits generalment acceptats per als microplàstics es basarien per la banda inferior en els residus retinguts per una malla de nèuston de 0,25 mm i un límit superior d’aproximadament 5 mm; per sota hi hauria els nanoplàstics. Els mesoplàstics tindrien un límit inferior de 5 mm i, tot i que amb cap límit superior definit, Eriksen et al. (2014) estableixen el límit superior del mesoplàstic en 200 mm. Els macroplàstics se situarien per sobre. El procés de fragmentació es pot explicar com a resultat de l’exposició al sol, els efectes de les onades, el contacte amb la vida marina i els canvis de temperatura. Un cop convertits en microplàstics són molt difícils d’eliminar i sovint són confosos amb aliments per part d’animals marins. Menció especial reben altres petits fragments de plàstic flotants; les llàgrimes de les sirenes o bé mermaid tears, diminutes boletes de resina plàstica que formen la base de construcció de cada producte plàstic fabricat; els microbeads, petites partícules de plàstic sòlid de menys d’un mil·límetre els més grans (de polietilè, polipropilè o poliestirè, materials sovint utilitzats en productes cosmètics i de cura personal); o les microfibres, en algunes ocasions residus de productes tèxtils però també, de vegades, derivats del món del plàstic. En qualsevol cas, les llàgrimes de les sirenes, els microbeads o les microfibres i els residus de plàstic fragmentats (microplàstics i nanoplàstics), arriben a una mida microscòpica al llarg del temps, romanen a tot arreu i gairebé no es poden netejar. Quan aquests materials entren als nostres mars i oceans es converteixen en un dels problemes més omnipresents a causa de les seves propietats inherents: la flotabilitat, la durabilitat, la propensió a absorbir els contaminants de l’aigua, la seva capacitat de fragmentar-se en peces microscòpiques i, més important, la seva provada possibilitat de descompondre’s i deixar anar tòxics a l’aigua de mar.
53
29/3/21 14:58
Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón
Els plàstics en el medi marí (estats) Els processos de degradació dels plàstics són molt més lents en l’aigua que en la terra; en aquest mitjà, el temps per completar la mineralització d’un plàstic (procés a través del qual una substància orgànica es converteix finalment en inorgànica) pot estimar-se en centenars, o fins i tot, milers d’anys (Barnes, 2009). A causa del procés de degradació per fragmentacions successives i la seva lenta mineralització, l’entrada acumulada de materials de plàstic en mars i oceans ha determinat la presència de multitud de micro- i nanopartícules de plàstic en tots ells, fins i tot a l’Àrtic o l’Antàrtida (Waller et al., 2017). Aquestes partícules de plàstic són presents a la superfície dels mars i dels oceans, a la columna d’aigua, en els sediments, a les costes i platges, però també en els sistemes digestius dels organismes que els habiten, en les seves estructures de respiració i en els seus teixits. Algunes de les preguntes que ens fem avui en dia exigeixen conèixer en quines concentracions trobem aquests materials en mars i oceans, on s’acumulen, com s’hi mouen, i quines són les taxes d’augment. Des dels anys vuitanta es coneix que grans concentracions de deixalles marines s’acumulen en regions governades per vòrtexs de corrents oceànics, les garbage patches (vegeu la figura 3). Les garbage patches estan formades per corrents oceànics rotatoris, gyres, i són zones que donen peu a veure residus amalgamats atrapant vida marina i que ens deixen imatges icòniques sobre l’estat dels nostres mars i oceans. El 2014, un altre grup de científics que col· laboraven amb l’organització no governamental 5 Gyres (https://www.5gyres.org/) va publicar una primera estima sobre la contaminació de plàstics flotants en els oceans (Eriksen et al., 2014). Mitjançant modelització oceanogràfica, van estimar que 268.940 tones i uns 525 milers de bilions de partícules suren per la superfície dels oceans, el que es coneix com plastic smog (vegeu la taula 1). Malgrat aquesta enorme quantitat, els mateixos autors assenyalaven que la presència de microplàstics a la superfície era menor de la que els models semblaven indicar d’acord amb els patrons de fragmentació i descomposició obtinguts al laboratori. La desaparició de plàstics de la superfície pot ser deguda a diversos processos: l’eliminació per foto- i biodegradació, la ingestió per organismes, la disminució de la flotabilitat per fricció, l’arrossegament per sedimentació, la pesca i l’arribada a les costes entre d’altres.
54
Revista TSCB 70.indd 54
Figura 3. Mapa d’acumulacions de deixalles marines en els oceans (extret de 5 Gyres).
Eriksen et al. (2014) determinaven que de les 268.940 tones estimades, el 75,4 % devia estar format per macroplàstics, un 11,4 % per mesoplàstics i la resta (35.540 tones) per partícules petites de microplàstics i nanoplàstics. Aplicant aquest percentatge de pes per a partícules petites de plàstic (13,2 %) a l’estima obtinguda en el seu model per al mar Mediterrani (23.150 tones, vegeu la taula 1) podríem estimar el pes de la fracció petita (micro- i nanoplàstics) en aquest mar Mediterrani de l’ordre de 3.056 tones; un valor una mica superior al que vam obtenir en la nostra estima del projecte Nixe III. Nombroses espècies ingereixen microplàstics i fan que estiguin disponibles també per als seus depredadors i així successivament,
i contribueixen d’aquesta manera a l’eliminació diferencial de petites partícules de la superfície, per exemple acumulant microplàstics en les seves excrecions i millorant-ne així l’enfonsament. Alguns microbis podrien biodegradar partícules de microplàstics i afavorir la seva mineralització (Dussud et al., 2018). Mitjançant la disminució de la flotabilitat per fricció o l’arrossegament per sedimentació, s’han trobat partícules de microplàstic a les zones abissals més remotes dels ambients marins, els seus sediments profunds (Cauwenberghe et al., 2013); i el seu desplaçament als fons, on moltes d’aquestes partícules de plàstic romandran entre aigües per llargs períodes de temps gràcies a la seva flotabilitat.
Taula 1. Valors d’acumulació de plàstics flotants globalment i extensió dels oceans (adaptat d’Eriksen et al., 2014) Pacífic nord
Pacífic sud
Atlàntic nord
Atlàntic sud
Oceà Índic
Mediterrani
TOTAL
Nombre de partícules (milers de bilions de partícules)
199,0
49,1
93,0
29,7
130,0
24,7
525,0
Pes (tones)
96.400
21.020
56.470
12.780
268.940
Extensió (milers de quilòmetres quadrats)
59.130
23.150
Oceà Pacífic
Oceà Atlàntic
Índic
Mediterrani
155.557
76.762
68.556
2.510
Treballs de la Societat Catalana de Biologia, 70: 51-59
29/3/21 14:58
Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans
Taula 2. Valors estimats de plàstic en compartiments de l’espai marí (adaptat d’Eunomia, 2016)
Localització del plàstic
Estudis de referència
Extensió (milions de quilòmetres quadrats)
Pes (valor mitjà en kg per km o km2)
Estimació global (milions de tones)
Flotant
Eriksen et al. (2014); Cózar et al. (2014)
361
0,74 kg per km2
0,27
Platges
Ocean Conservancy (2012); Ryan et al. (2014); Smith i Markic (2013)
1,4
1.013 kg per km
1,4
Enterrat a les platges
Kusui i Noda (2003)
0,52
110 kg per km
0,057
Fons marins
Pham et al. (2014)
361
70-180 kg per km2
25,3-65
TOTAL
Amb la intenció d’avaluar la quantitat de plàstic que es troba a cada compartiment marí (flotant, costes i platges, i fons marins), un informe d’Eunomia (2016) va intentar unir tots els coneixements amb una visió general. La taula 2 presenta aquests resultats. El 94 % del plàstic estaria en els fons (estimes fetes amb dades procedents de la Mediterrània que s’aplicaven sobre una base d’àrea per unitat [densitats de 70-180 kg km-2 amb un màxim de 400 ± 180 kg km-2 en les zones més afectades]), un 5 % acabaria a les costes i només un 1 % estaria en la fracció flotant. A part de la seva presència en organismes, en fons marins o en la columna d’aigua, un altre destí final d’aquests materials són les costes, i especialment les platges. Són icòniques les imatges de platges, fins i tot en llocs verges, on observem una presència majoritària de materials de plàstic. Recentment, científics anglesos i australians van fer una recerca a l’illa de Henderson (una illa de 3.700 ha), la més gran de les quatre illes de les Pitcairn (patrimoni de la humanitat per la UNESCO, al mig de l’oceà Pacífic sud), un dels pocs atol·lons del món que han escapat de l’activitat humana. Els investigadors van trobar que a les seves platges hi havia al voltant de 38 milions de peces i 18.000 tones de residus de plàstic, i es van sorprendre de saber que la majoria de les deixalles, al voltant del 70 %, no eren visibles i no entraven en aquests càlculs (fins a 4.500 peces per metre quadrat enterrades a una profunditat de 10 cm). Cada any, milers de persones realitzen neteges voluntàries de platges per recollir manualment centenars de milers de peces de deixalles (majoritàriament plàstic).
Les conseqüències per a l’home (benestar) L’entrada de plàstics als mars i oceans, el seu transport, fragmentació, mineralització i acumulació tenen conseqüències que van molt més enllà de l’alteració dels ecosistemes, i afecten la relació de l’ésser humà amb aquests ecosistemes. L’informe de Nacions Unides Mil
27-66,7
lennium Ecosystem Assessment va posar de manifest la importància dels serveis dels ecosistemes (Daly, 1997) per al benestar i el desenvolupament de les societats humanes (ME, 2005). L’avaluació va definir quatre categories de serveis: a) serveis de subministrament; b) serveis de regulació; c) serveis culturals, i d) serveis de suport. Les conseqüències negatives (directes o indirectes) per a l’ésser humà poden quedar englobades en tres grans categories.
Conseqüències sobre la biodiversita t Els efectes nocius dels plàstics sobre la biodiversitat es coneixen des de fa temps (Ogunola i Palanisami, 2016). Quedar atrapat, la potencial asfíxia, la ingestió i dispersió de partícules de plàstic, o els efectes que tenen els plàstics quan entren a la cadena alimentària i produeixen processos de bioacumulació i biomagnificació fins al potencial consumidor final, serien les principals conseqüències que podrien observar-se en els organismes. A més, el plàstic pot actuar com a vector de dispersió, vehicle potencial per iniciar processos invasius d’espècies en llocs molt diferents dels de procedència (Kiessling et al., 2015). Molts organismes s’enganxen a peces de plàstic grans, xarxes i altres aparells de pesca, la denominada «pesca fantasma»: tortugues de mar (Kühn et al., 2015), foques (Derraik, 2002), balenes (Galgani et al., 2014), aus marines (Franeker i Law, 2015) o peixos (Alomar i Deudero, 2017). Altres vegades els plàstics s’enganxen als animals i en limiten el moviment, la qual cosa causa mortalitats (Antonelis et al., 2011; Cho, 2011), provoca la restricció o impossibilitat d’adquirir aliments (Laist, 1997), fa ferides que poden causar infeccions, deformitats o amputacions (Orós et al., 2005) i afecta també la vida sèssil de corals, gorgònies o bivalves, entre altres (Fabri et al., 2014; Lamb et al., 2018). La ingesta de plàstic (directa o accidental) és un dels principals problemes. La ingesta directa sol donar-se com a resultat de la confuTreballs de la Societat Catalana de Biologia, 70: 51-59
Revista TSCB 70.indd 55
sió de partícules amb preses (Kühn et al., 2015; Schuyler et al., 2014) o la curiositat envers els residus, inclús el color de les partícules pot influir en la ingesta (Santos et al., 2016). D’altra banda, la ingesta accidental sol presentar-se en organismes filtradors (Fossi et al., 2014, Cauwenberghe i Janssen, 2014) però també succeeix com a conseqüència de la depredació d’un individu que prèviament havia ingerit plàstic (Boerger et al., 2010; Eriksson i Burton, 2003). Un cop ingerit el residu, comencen a produir-se els impactes dins l’organisme. L’obstrucció total del tracte digestiu o el dany que provoca el procés d’ingestió pot causar la mort però la seva obstrucció parcial pot conduir a una reducció de la ingesta alimentària necessària per al desenvolupament o afectar l’eficiència dels processos digestius de l’individu (Lavers et al., 2014). Les partícules de plàstic ingerides poden portar compostos químics afegits durant la fabricació: carcinògens (Lithner et al., 2011) i disruptors endocrins (Rochman, 2015), i provocar efectes neuroconductuals o malalties reproductives (Verma et al., 2016). Encara que l’atrapament i la ingesta s’han reportat més vegades, altres impactes, com l’asfíxia, causen efectes perjudicials tan importants com els anteriors. L’asfíxia afecta directament tant la fauna com la flora i també indirectament perquè en quedar atrapats la via respiratòria es pot obstruir externament (Sazima et al., 2002). L’asfíxia també pot aparèixer per la presència de sediments anòxics produïts pels residus de plàstics i que també poden afectar invertebrats del bentos o flora marina (Kühn et al., 2015).
Conseqüències sobre la salut humana Tot i que els mateixos polímers de plàstic poden considerar-se inerts, la gran quantitat d’additius afegits poden produir efectes perjudicials en organismes i finalment poden arribar a l’home i afectar la seva salut (Galloway, 2015). Compostos com el bisfenol A, la bisfe-
55
29/3/21 14:58
Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón
nona, retardants de flama, organotines, ftalats o triclosan són alguns d’aquests compostos que poden deixar les partícules com a conseqüència de processos de lixiviació; alguns additius actuen com disruptors hormonals (Moriyama et al., 2002), afavoreixen l’obesitat i les malalties cardiovasculars (Lang, 2008; Melzer et al., 2012), alteren les funcions reproductives i el seu desenvolupament (Rochester, 2013), redueixen la flora intestinal, o produeixen canvis en l’estructura de les biomolècules que interactuen amb ells (Galloway, 2015).
Conseqüències econòmiques Els plàstics flotants causen greus pèrdues econòmiques a diferents sectors. Entre els més afectats hi ha les comunitats costaneres (major despesa en neteja de platges, salut pública i eliminació de deixalles), el turisme (pèrdua d’ingressos, mala publicitat), el transport (neteja d’hèlixs d’embarcacions, motors danyats, eliminació d’escombraries i maneig de deixalles en ports), o la pesca (reduccions de captures, xarxes danyades i la seva neteja, contaminació). A més, aquests materials presenten costos intangibles que afecten el benestar de les persones i que, en bona part, van lligats als serveis ecosistèmics culturals: recreatius, estètics, educatius o espirituals. Els pocs estudis que han intentat avaluar els costos (directes, marginals o alternatius i socials) tendeixen a subestimar-los. Els costos directes es refereixen als directament atribuïbles a les conseqüències de la contaminació per plàstics: a) neteja de platges (18-19 milions d’euros anuals al Regne Unit o 10,4 milions d’euros anuals als Països Baixos); b) costos del dany als vaixells de pesca i els seus engranatges (fins a 19.000 euros l’any i vaixell a la pesca escocesa), i c) obstrucció de les canonades en aqüicultura (al voltant de 160.000 euros anuals als productors d’aqüicultura a Escòcia) (Mouat et al., 2010). Els costos marginals o alternatius es relacionen principalment amb la pèrdua d’ingressos o amb els costos d’oportunitat. El sector més afectat és el turisme. Una petita illa de Corea del Sud va perdre per temes estètics 500.000 turistes en un any (amb un cost de 2329 milions d’euros). La pesca és un altre sector afectat a causa de la possible pèrdua de captures degudes a captures incidentals de plàstic o la competència de l’efecte anomenat pesca fantasma (Newman et al., 2015). Finalment, tenim els costos socials lligats al benestar de les persones, relacionats principalment amb els
56
Revista TSCB 70.indd 56
diferents impactes per a la salut humana i aspectes de caràcter recreatiu i cultural.
Perseguint la recerca de solucions (respostes) Com hem vist anteriorment, ens enfrontem a una problemàtica (increment de la presència de partícules de plàstic en mars i oceans) que augmentarà si no s’afronta. El fet que el problema sigui global i que el transport d’aquests materials contaminants sigui ràpid (corrents marins i altres condicions oceanogràfiques) fa que les solucions hagin de ser també globals i la col·laboració cada dia més necessària. Les solucions de futur poden englobar-se en dos tipus d’estratègies: estratègies de minimització en tres àmbits, societat, regulació i indústria, i estratègies de restauració. En qualsevol cas, és necessària una cooperació oberta a escala planetària entre institucions, indústria i societat que fomenti la presa de decisions basada en l’evidència científica.
Estratègies de minimització Societat La contaminació del medi marí per materials de plàstic té fortes arrels socials i conductuals. Necessitem conèixer millor els factors contextuals que impulsen el comportament de les persones cap a l’ús del plàstic. Existeixen, però, perspectives molt diferents sobre aquesta problemàtica. En unes enquestes sobre la problemàtica dels residus plàstics al mar, realitzades el 2015, durant el projecte Nixe III, als banyistes de l’illa de Mallorca, el 67 % dels enquestats van respondre que existeix una manca d’informació sobre aquesta problemàtica i els riscos que això comporta, i el 70 % apuntaven una falta de conscienciació en la recerca de solucions al problema (Ruiz-Orejón, 2018). Tot i això la contaminació per plàstics és avui molt més visible. Tothom està familiaritzat amb l’ús del plàstic i la nostra vida diària depèn molt del seu ús. D’aquesta forma, fàcilment, podem mobilitzar campanyes d’informació per a l’eliminació del plàstic, desenvolupar activitats educatives per millorar-ne l’ús o es poden fer projectes audiovisuals (A Plastic Ocean, 2017, a Netflix). No obstant això, encara és necessària una major integració de les visions de tots els grups d’interès, des d’escales internacionals fins a locals, per abordar els problemes relacionats amb els residus plàstics.
Regulació S’han promogut diferents instruments regulatoris posant la Mediterrània com a exemple. Pel que fa als instruments glo-
bals, des del Conveni de Londres de 1975 (reforçat el 1994 per l’entrada en vigor de la Convenció sobre el Dret del Mar – UNCLOS) es prohibeix l’eliminació de plàstics persistents i altres materials al mar, la Convenció MARPOL (73/1978, annex v del 2013) prohibeix l’eliminació de tota classe d’escombraries al mar des dels vaixells. El 1995 es va establir el programa mundial d’acció per a la protecció del medi marí a partir d’activitats terrestres (GPA). El GPA és la primera regulació que té en compte la connexió entre ecosistemes (les interaccions terra-mar) en relació amb els contaminants, i va estar emparat pel PNUMA (Programa de les Nacions Unides per al Medi Ambient) a través del Programa de Mars Regionals per aconseguir la seva implementació. Pel que fa a la regió mediterrània, el 1975, setze països mediterranis van adoptar el Pla d’Acció per a la Mediterrània (MAP), el primer programa de mars regionals. Un any més tard, aquests països van aprovar la Convenció de Barcelona i el 1995 l’anomenada Convenció per a la Protecció del Medi Marí i la Regió Costanera del Mediterrani (Conveni de Barcelona). Entre els seus objectius principals hi ha l’avaluació i el control de la contaminació marina i la prevenció, reducció i eliminació de la contaminació procedent de fonts terrestres i marítimes. Es poden esmentar diverses directives de la Unió Europea per la seva relació amb les deixalles marines: la Directiva d’instal·lacions de recepció dels ports (Directiva PRF, 2002); la Directiva marc de residus (Directiva WF, 2008); la Directiva sobre abocadors (Directiva Landfill, 1999) i la Directiva sobre residus d’envasos i embalatges (Directiva PPW, 2015). Més recentment, un canvi en la política europea de traslladar les directives d’impacte a una nova generació de directives per a la protecció del medi ambient va donar lloc a la Directiva marc de l’aigua (Directiva MWF) i la Directiva marc d’estratègies marines (Directiva MSFD), instruments integrals per al desenvolupament de dues visions, el bon estat ecològic i la bona situació mediambiental, respectivament. La MSFD és el principal instrument integral de la política per a la protecció del medi marí a la Unió Europea i la bona situació mediambiental (good environmental status, GES), el seu principal objectiu. La GES s’avalua a través d’un total d’onze descriptors; un d’ells, el descriptor 10, està relacionat amb els residus marins amb l’objectiu final que les
Treballs de la Societat Catalana de Biologia, 70: 51-59
29/3/21 14:58
Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans
propietats i quantitats de les deixalles marines no causin danys al medi ambient costaner i marí. El descriptor 10 avalua el possible dany en tres categories: l’impacte ecològic de les escombraries, els impactes econòmics i els impactes socials. També es proposen una sèrie de compartiments per determinar els nivells acceptables de dany en aquestes categories, començant pel medi marí (fons marins, superfície del mar, columna d’aigua, litoral), efectes ecològics de les escombraries marines, problemes relacionats amb la degradació de les escombraries i efectes socials i econòmics provocats pels residus marins (Galgani et al., 2010). Finalment, la Comissió de la Unió Europea ha establert com a prioritat una nova estratègia per als plàstics amb la introducció de l’economia circular en la seva gestió (EU-COM, 2018). El 2017, la Comissió va confirmar que se centraria en la producció i l’ús de plàstics i treballaria per aconseguir que tots els envasos de plàstic siguin reciclables el 2030; el Parlament Europeu ha aprovat recentment la prohibició de comercialització d’alguns plàstics d’un sol ús per al 2021, així com la recollida selectiva del 90 % d’ampolles de plàstic per al 2025.
Indústria La indústria veu en l’economia circular el model estratègic a seguir. El desenvolupament del concepte d’economia circular basat en la sostenibilitat dels recursos naturals limitats i la seva capacitat de recuperació obre els nous models de negoci integrats a la natura (Sardá i Pogutz, 2019), una nova economia al món del plàstic (Ellen Macarthur Foundation, 2017). Aquesta nova economia del plàstic ofereix una nova visió, alineada amb els principis de l’economia circular i amb un enfocament explícitament sistèmic i de col·laboració. La visió última d’aquesta nova economia del plàstic és que els plàstics mai no es converteixen en residus. Les principals necessitats que l’informe assenyala són: a) màxima prioritat: desenvolupar mesures per a un segon ús efectiu d’aquests materials després de la seva primera utilització; b) reduir dràsticament les pressions al medi marí produïdes per les fuites de materials de plàstic envers aquests sistemes naturals, i c) la necessitat òbvia a causa de les regulacions futures de desacoplar la producció de plàstics de l’ús de matèries primeres fòssils, la qual cosa permetria que la indústria entrés en un procés de producció amb baix contingut de carboni, i participés de forma efectiva en el món econòmic del futur.
Estratègies de restauració No entrarem en detall en les múltiples iniciatives que en l’actualitat s’estan desenvolupant per restaurar el medi marí, bàsicament en temes de neteja. Probablement, en l’àmbit global, la iniciativa privada més coneguda és The Ocean Cleanup, que assenyala que desplegant a gran escala els seus sistemes es podria netejar el 50 % del Great Pacific Garbage Patch cada cinc anys. Òbviament aquestes activitats de neteja es relacionen més amb les fraccions de plàstics de mida gran (la major part en pes) i no amb les diminutes partícules que es van formant per la seva fragmentació, la retirada de les quals és poc menys que impossible, almenys amb la tecnologia actual.
Conclusions finals Al voltant del 70 % de tots els residus que arriben als mars estan fets de plàstic (Galgani et al., 2010). Aquesta contaminació és global, i pot trobar-se des dels pols fins a l’equador i des de la costa i la superfície del mar fins als fons abissals. Aquesta contaminació és persistent; hem fabricat compostos extremadament resistents la degradació i posterior mineralització dels quals és molt, molt lenta. Els plàstics s’acumulen en els sediments de les zones abissals de les grans masses d’aigua del planeta i, en un futur, podran datar el pas de l’home per la Terra en l’Antropocè (www.anthropocene.
Figura 4. Síntesi de la informació mitjançant l’esquema conceptual DPSWR (drivers, pressures, states, welfare, responses). Entre parèntesis, les dades per a l’entorn mediterrani. Figura adaptada de Sardà i Pogutz, 2019. Les icones utilitzades en benestar són les recollides de TEEB, 2010.
Treballs de la Societat Catalana de Biologia, 70: 51-59
Revista TSCB 70.indd 57
info). Aquesta contaminació és molt incerta; estem començant a visualitzar els problemes que crea, ara els veiem, però encara no sabem fins on poden arribar i quines poden ser-ne les últimes conseqüències. A més, és una problemàtica molt complexa per la gran varietat de procedències, mides, formes i polímers dels plàstics. Aquesta és una tendència general i, per això, l’acumulació de residus de plàstic s’ha identificat en les reunions de l’Assemblea de Medi Ambient de les Nacions Unides com un dels problemes mundials importants. L’home ha creat els plàstics, en depenem i, ara, hem descobert que també són un problema. Un problema que al segle xxi afecta greument la salut de mar i oceans. Sintetitzant la informació d’aquest treball, la figura 4 mostra la problemàtica dels residus plàstics als mars i oceans: la conclusió general és que les dades no quadren. L’acumulació d’aquests materials en el medi marí mostra valors més petits del que les entrades anuals ens farien pensar. Per una banda, processos com la deposició de plàstics als fons abissals, la ingestió per organismes o l’arribada massiva a la costa i platges podrien estar infravalorats i, de l’altra, l’entrada de plàstics al mar podria ser més baixa que la que s’indica. El plàstic ha estat un important catalitzador del canvi tecnològic. Tenint en compte la naturalesa omnipresent del plàstic i la inevi-
57
29/3/21 14:58
Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón
tabilitat del seu consum, és fonamental la importància de garantir que aquest plàstic, quan es converteixi en residu, no acabi fora de situacions controlades. Atès que la mida de la població i la qualitat dels sistemes de gestió de residus determinen en gran mesura quins països aporten la massa més gran de residus que poden convertir-se en residus marins plàstics, sense una millora significativa de les infraestructures de gestió de residus en aquests països i un canvi radical en la forma d’usar (i llençar) aquests materials per part nostra, la presència de plàstics en mars i oceans augmentarà de la mateixa manera que ho fa la concentració de gasos d’efecte hivernacle a l’atmosfera, de manera exponencial. Conèixer millor aquesta problemàtica i com ens afecta és vital per adaptar-nos-hi i solucionar-la.
En un futur pròxim, per reduir l’impacte dels plàstics en el medi marí, es requeriran més estudis per comprendre els processos relacionats amb l’origen i el transport d’aquests residus, necessitarem centrar-nos més en l’anàlisi dels micro- i nanoplàstics i les seves conseqüències, així com en l’avaluació i el tractament de la percepció social i la consciència del problema per part de les societats humanes i també en el suport a països en desenvolupament. Atès que ens enfrontem a un problema d’àmbit global, per trobar una solució a l’acumulació de plàstics als mars i oceans calen solucions que impliquin educació, transferència de tecnologies, inversions público-privades als països de les conques de rius afectades que els permetin millorar la gestió dels residus. Cent anys després que l’arxiduc Ludwig Salvator d’Àustria explorés la Mediterrània en
un moment en què la conservació no significava res, la realitat actual mostra que al mar Mediterrani sura una elevada concentració de plàstics, i probablement augmentarà en un futur. Cal que el problema es traslladi a l’agenda política per accelerar noves polítiques que contribueixin a aturar l’impacte i la degradació ambiental, però que també es tralladi a la societat en la seva part més conductual.
Eriksson, C.; Burton, H. (2003). «Origins and biological accumulation of small plastic particles in fur seals from Macquarie Island». AMBIO, 32: 380-384. Eunomia Research and Consulting Ltd. (2016). Plastics in the marine environment. Regne Unit: Eunomia. Fabri, M. C. [et al.] (2014). «Megafauna of vulnerable marine ecosystems in French mediterranean submarine canyons: Spatial distribution and anthropogenic impacts». Deep. Sea Res. Part II Top. Stud. Oceanogr., 104: 184-207. Fossi, M. C. [et al.] (2014). «Large filter feeding marine organisms as indicators of microplastic in the pelagic environment. The case studies of the Mediterranean basking shark (Cetorhinus maximus) and fin whale (Balaenoptera physalus)». Mar. Environ. Res., 100: 17-24. Franeker, J. A. van; Law, K. L. (2015). «Seabirds, gyres and global trends in plastic pollution». Environ. Pollut., 203: 89-96. Galgani, F. [et al.] (2010). Marine Strategy Framework Directive: Task Group 10: Report Marine Litter. Lu xemburg: Publications Office of the European Union. (Scientific and Technical Research Series) DOI: 10.2788/86941. — (2014). «Monitoring the impact of litter in large vertebrates in the Mediterranean Sea within the European Marine Strategy Framework Directive (MSFD): Constraints, specificities and recommendations». Mar. Environ. Res., 100: 3-9. Galloway, T. S. (2015). «Micro- and nano-plastics and human health». A: Bergmann, M. [et al.] (ed.). Marine anthropogenic litter. Cham: Springer International Publishing, 343-366. DOI: 10.1007/978-3-31916510-3_13. Geyer, R. [et al.] (2017). «Production, use and fate of all plastics ever made». Sci. Adv., 3: e1700782. Jambeck, J. R. [et al.] (2015). «Plastic waste inputs from land into the ocean». Science, 347: 768-771. Kaiser, J. (2010). «The dirt on ocean garbage patches». Science, 328: 1506. Kiessling, T. [et al.] (2015). «Marine litter as habitat and dispersal vector». A: Bergmann, M. [et al.] (ed.). Marine anthropogenic litter. Cham: Springer International Publishing, 141-181. DOI: 10.1007/978-3-31916510-3_6. Kühn, S. [et al.] (2015). «Deleterious effects of litter on marine life». A: Bergmann, M. [et al.] (ed.). Marine anthropogenic litter. Cham: Springer International Publishing, 75-116. DOI: 10.1007/978-3-319-165103_4. Kusui, T; Noda, M. (2003). «International survey on the distribution of stranded and buried litter on beaches
along the Sea of Japan». Mar. Pollut. Bull., 47, 1-6: 175-179. Laist, D. W. (1997). «Impacts of marine debris: Entanglement of marine life in marine debris including a comprehensive list of species with entanglement and ingestion records». Nova York: Springer Verlag. Lamb, J. B. [et al.] (2018). «Plastic waste associated with disease on coral reefs». Science, 359: 460-462. Lang, I. A. (2008). «Association of urinary bisphenol A concentration with medical disorders and laboratory abnormalities in adults». JAMA, 300: 1303-1310. Lavers, J. L. [et al.] (2014). «Plastic ingestion by Flesh-footed Shearwaters (Puffinus carneipes): Implications for fledgling body condition and the accumulation of plastic-derived chemicals». Environ. Pollut., 187: 124-129. Lithner, D. [et al.] (2011). «Environmental and health hazard ranking and assessment of plastic polymers based on chemical composition». Sci. Total Environ., 409: 3309-3324. Melzer, D. [et al.] (2012). «Urinary bisphenol A concentration and risk of future coronary artery disease in apparently healthy men and women». Circulation, 125: 1482-1490. Millennium Ecosystem Assessment (ME) (2005). Ecosystems and human wellbeing: Synthesis. Washington: Island Press. Moore, C. J. [et al.] (2001). «A comparison of plastic and plankton in the North Pacific Central Gyre». Mar. Pollut. Bull., 42: 1297-1300. Mordecai, G. [et al.] (2011). «Litter in submarine canyons off the west coast of Portugal». Deep Sea Res. Part II: Top. Stud. Oceanogr., 58: 2489-2496. Moriyama, K. [et al.] (2002). «Thyroid hormone action is disrupted by bisphenol A as an antagonist». J. Clin. Endocrinol. Metab., 87: 5185-5190. Mouat, J. [et al.] (2010). Economic impacts of marine litter. Shetland: Kommunernes Internationale Miljøorganisation (KIMO). 105 p. Newman, S. [et al.] (2015). «The economics of marine litter». A: Bergmann, M. [et al.] (ed.). Marine anthropogenic litter. Cham: Springer International Publishing, 367-394. DOI: 10.1007/978-3-319-16510-3_14. Ocean Conservancy (2012). The Ocean Trash Index: Results of the International Coastal Cleanup (ICC). Ogunola, O. S.; Palanisami, T. (2016). «Microplastics in the marine environment: Current status, assessment methodologies, impacts and solutions». J. Pollut. Eff. Control, 4: 2. Orós, J. [et al.] (2005). «Diseases and causes of mortality among sea turtles stranded in the Canary Islands, Spain». Dis. Aquat. Organ., 63: 13-24.
Agraïments Aquest treball es va dur a terme en el marc del projecte Nixe III (http://www.nixe3.com/), el projecte Playa+ del Pla de Recerca Nacional d’Espanya en R + D + I (CGL2013-49061), i el projecte KnowSeas+ (201530E018). Agraïm a la tripulació del Nixe III, de la R/V Pola, de la R/V Wizard i de la R/V Rossina di Mare la seva ajuda durant les campanyes.
Bibliografia Alomar, C.; Deudero, S. (2017). «Evidence of microplastic ingestion in the shark Galeus melastomus Rafinesque, 1810 in the continental shelf off the western Mediterranean Sea». Environ. Pollut., 223: 223-229. Antonelis, K. [et al.] (2011). «Dungeness crab mortality due to lost traps and a cost-benefit analysis of trap removal in Washington State waters of the Salish Sea». North Am. J. Fish. Manag., 31: 880-893. Barnes, D. K. A. [et al.] (2009). «Accumulation and fragmentation of plastic debris in global environments». Philos. Trans. R. Soc. B., 364: 1985-1998. Berkes, F.; Folke, C. (1998). «Linking social and ecological systems for resilience and sustainability». A: Berkes, F.; Folke, C. (ed.). Linking social and ecological systems: Management practices and social mechanisms for building resilience. Cambridge; Nova York: Cambridge University Press, 1-25. Boerger, C. M. [et al.] (2010). «Plastic ingestion by planktivorous fishes in the North Pacific Central Gyre». Mar. Pollut. Bull., 60: 2275-2278. Cauwenberghe, L. van [et al.] (2013). «Microplastic pollution in deep-sea sediments». Environ. Pollut., 182: 495-499. Cauwenberghe, L. van; Janssen, C. R. (2014). «Microplastics in bivalves cultured for human consumption». Environ. Pollut., 193: 65-70. Cho, D. O. (2011). «Removing derelict fishing gear from the deep seabed of the East Sea». Mar. Pollut., 35: 610614. Cooper, P. (2013). «Socio-ecological accounting: DPSWR, a modified DPSIR framework, and its application to marine ecosystems». Ecol. Econ., 94: 106-115. Cózar, A. [et al.] (2015). «Plastic accumulation in the Mediterranean Sea». PLoS One, 10: e0121762. Daily, G. C. (ed.) (1997). Nature’s Services. Washington: Island Press. Derraik, J. G. B. (2002). «The pollution of the marine environment by plastic debris: A review». Mar. Pollut. Bull., 44: 842-852. Dussud, C. [et al.] (2018). «Colonization of non-biodegradable and biodegradable plastics by marine microorganisms». Front. Microbiol. DOI: 10.3389/ fmicb.2018.01571. Ellen MacArthur Foundation (2017). The new plastics economy: Rethinking the future of plastics and catalyzing action. Cowes: Ellen MacArthur Foundation. Eriksen, M. [et al.] (2014). «Plastic pollution in the world’s oceans: More than 5 trillion plastic pieces weighing over 250,000 tons afloat at sea». PLoS One. DOI: 10.1371/journal.pone.0111913.
58
Revista TSCB 70.indd 58
Treballs de la Societat Catalana de Biologia, 70: 51-59
29/3/21 14:58
Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans
Pham, C. K. [et al.] (2014). «Marine litter distribution and density in European seas, from the shelves to deep basins». PLoS ONE, 4: e95839. Plasticseurope (2018). Plastics –the facts 2017: An analysis of plastic production, demand and waste data. <https://www.plasticseurope.org/application/ files/5715/1717/4180/Plastics_the_facts_2017 _FINAL_for_website_one_page.pdf>. Rochester, J. R. (2013). «Bisphenol A and human health: A review of the literature». Reprod. Toxicol., 42: 132-155. Rochman, C. M. (2015). «The complex mixture, fate and toxicity of chemicals associated with plàstic debris in the marine environament». A: Bergmann, M. [et al.] (ed.). Marine anthropogenic litter. Cham: Springer International Publishing, 117-140. DOI: 10.1007/978-3319-16510-3_5. Ruiz-Orejón, L. F. (2018). Floating plastic debris in the Central and Western Mediterranean Sea: Current status and its social perception. Tesi doctoral. Universitat de Barcelona. Ruiz Orejón, L. F. [et al.] (2016). «Floating plastic debris in the Central and Western Mediterranan Sea». Mar. Env. Res., 120: 136-144.
—
(2018). «Now, you see me: High concentrations of floating plastic debris in the coastal waters of the Balearic Islands (Spain)». Mar. Pollut. Bull., 133: 636646. — (2019). «Quarterly variability of floating plastic debris in the Marine Protected Area of the Minorca Channel (Spain)». Environ. Pollut., 252: 1742-1754. Ryan, P. G. [et al.] (2014). «The effect of fine-scale sampling frequency on estimates of beach litter accumulation». Mar. Pollut. Bull., 88: 249-254. Santos, R. G. [et al.] (2016). «Marine debris ingestion and Thayer’s law – The importance of plastic color». Environ. Pollut., 214: 585-588. Sardá, R.; Pogutz, S. (2019). Corporate sustainability in the 21st century: Increasing the resilience of social-ecological systems. Londres: Routledge. Sazima, I. [et al.] (2002). «Plastic debris collars on juvenile carcharhinid sharks (Rhizoprionodon lalandii) in southwest Atlantic». Mar. Pollut. Bull., 44: 11491151. Schmidt, C. [et al.] (2017). «Export of plastic debris by rivers into the sea». Environ. Sci. Technol., 51: 1224612253.
Treballs de la Societat Catalana de Biologia, 70: 51-59
Revista TSCB 70.indd 59
Schuyler, Q. [et al.] (2014). «Global analysis of anthropogenic debris ingestion by sea turtles». Conserv. Biol., 28: 129-139. Smith, S. D. A.; Markic, A. (2013). «Estimates of marine debris accumulation on beaches are strongly affected by the temporal scale of sampling». PLoS ONE, 8: e83694. TEEB (The Economics of Ecosystem and Biodiversity) (2010). The Economics of ecosystem and biodiversity: Ecological and economic foundations. Londres; Washington: Earthscan. Uhrin, A.; Shellinger, J. (2011). «Marine debris impacts to a tidal fringing-marsh in North Carolina». Mar. Pollut. Bull., 62: 2605-2610. Verma, R. [et al.] (2016). «Toxic pollutants from plastic waste – A Review». Procedia Environ. Sci., 35: 701708. Waller, C. L. [et al.] (2017). «Microplastics in the Antarctic marine system: An emerging area of research». Sci. Total Environ., 598: 220-227.
59
29/3/21 14:58
Beneficis dels ecosistemes marins per a la salut i el benestar de les persones Josep Lloret i Arnau Carreño Grup de Recerca SeaHealth i Càtedra Oceans i Salut Humana, Institut d’Ecologia Aquàtica, Universitat de Girona Correspondència: Josep Lloret. Grup de Recerca SeaHealth i Càtedra Oceans i Salut Humana. Institut d’Ecologia Aquàtica. Universitat de Girona. C/ Maria Aurèlia Capmany, 69. 17003 Girona. Adreça electrònica: Josep.lloret@udg.edu.
DOI: 10.2436/20.1501.02.193 ISSN (ed. impresa): 0212-3037 ISSN (ed. digital): 2013-9802 http://revistes.iec.cat/index.php/TSCB Rebut: 17/02/2019 Acceptat: 26/07/2019
Resum Els ecosistemes marins ens proporciones diversos béns i serveis com són noves medicines, productes alimentaris saludables i llocs per a l’esbarjo que contribueixen positivament a la salut física i mental de les persones, tant pel que fa al tractament de determinades malalties com el càncer (en relació als nous medicaments antitumorals descoberts a partir d’espècies marines) com a la prevenció de malalties relacionades amb el risc cardiovascular, l’Alzheimer o la depressió. No obstant això, els mars i oceans són també una font important de riscos per a la salut que són de molta actualitat (proliferacions d’algues nocives, contaminants, paràsits, etc.). Així mateix, moltes espècies i hàbitats marins estan patint diversos impactes antropogènics i mediambientals que amenacen de fer disminuir o eliminar els beneficis i augmentar els riscos procedents dels ecosistemes marins. Els estudis que relacionen els ecosistemes marins i la salut i el benestar de les persones són encara escadussers i en aquest sentit existeix actualment una línia d’investigació innovadora anomenada Oceans i Salut Humana que intenta justament, a través de diferents mecanismes interdisciplinaris, avançar en l’estudi d’aquestes relacions complexes. L’objectiu final és poder contribuir a la protecció dels ecosistemes marins perquè aquests puguin continuar aportant els aspectes beneficiosos per a la salut de les persones i disminuir els riscos sanitaris. Aquest document sintetitza tots aquests aspectes, que són de gran actualitat sobretot a la mar Mediterrània.
Paraules clau: oceans i salut humana, recursos pesquers, activitats marítimes recreatives, protecció de la salut, conservació dels ecosistemes marins.
Benefits of marine ecosystems for people’s health and well-being Summary Marine ecosystems provide us with different goods and services, such as new medicines, healthy seafood products and recreational opportunities that contribute positively to the physical and mental health of people through both the treatment of certain diseases such as cancer (with new antitumoral drugs developed from marine species) and the prevention of diseases connected with cardiovascular risk, Alzheimer’s or depression. Marine ecosystems, however, are also an important source of health risks as a result of the proliferation of harmful algae (HABs), pollutants, parasites, etc. Likewise, many marine species and habitats are suffering from various anthropogenic and environmental impacts that threaten to reduce or eliminate the benefits to health and to increase the health risks of marine ecosystems. Studies on the relation between marine ecosystems and people’s health and well-being are still few in number. An innovative research line called “oceans and human Health” is now underway that applies various interdisciplinary mechanisms for the purpose of furthering the study of the complex links between human health and marine ecosystems. Its ultimate goal is to contribute to the protection of marine ecosystems so that they can continue to provide benefits for people’s health and to reduce health risks. This paper summarizes all these aspects, which are of special importance in the case of the Mediterranean Sea.
Keywords: oceans and human health, fishery resources, maritime recreational activities, health protection, conservation of marine ecosystems.
1. Introducció Els ecosistemes marins ens proporcionen una àmplia gamma de béns i serveis que són essencials per a la població humana. Aquests inclouen aliments, combustibles, productes biològics amb fins medicinals, regulació del clima, desenvolupament de les activitats turístiques i beneficis psicològics i emocionals, entre altres. En les darreres dècades s’han fet nombrosos estudis que analitzen l’impacte dels humans i del canvi climàtic sobre els ecosistemes marins i els seus recursos, però pocs han relacionat el medi marí amb la salut de les persones. La major part dels estudis s’ha focalitzat a analitzar els impactes en la salut dels riscos emergents, com són la contaminació, les proliferacions d’algues nocives i organismes patògens i l’impacte de condicions meteorolò-
60
Revista TSCB 70.indd 60
giques i oceanogràfiques adverses (huracans, tsunamis, etc.) sobre la salut pública. Així mateix, hi ha nombrosos estudis sobre l’impacte de les activitats humanes com la pesca, l’aqüicultura i el turisme sobre els béns i serveis que ofereixen els ecosistemes marins. No obstant això, les interrelacions entre la salut i el benestar humà i la biodiversitat marina continuen sent poc conegudes. En aquest sentit, en els darrers anys s’està impulsant a tot el món una nova línia de recerca anomenada Oceans i Salut Humana per a estudiar les relacions entre la salut i el benestar de la població i els béns i serveis provinents dels mars i dels oceans (vegeu, per exemple, European Marine Board, 2013; Chivian i Bernstein, 2008; National Research Council, 1999; Fleming et al., 2014, 2006; Lloret et al.,
2016; Lloret 2010; Glibert et al. 2018; Fleming et al., 2006, 2014; Tacón i Metian, 2013; Allen, 2011; Gerber et al., 2012; Walsh et al., 2008). Aquests estudis intenten demostrar com els ecosistemes marins proporcionen una àmplia gama de béns i serveis que són essencials per a la salut i el benestar de les persones, però també són una font de riscos que cal gestionar bé per a limitar-los (figura 1). Els estudis sobre oceans i salut humana són essencials no només per a la salut i el benestar de les persones sinó també per a la sostenibilitat de l’anomenada economia blava (blue economy) que impulsa la Unió Europea (Commissió Europea, 2019). Amb tot, les interrelacions entre la salut i el benestar de les persones i els ecosistemes marins continuen sent força desconegudes, i per això aquesta temàtica té molta pro-
Treballs de la Societat Catalana de Biologia, 70: 60-66
29/3/21 14:58
Beneficis dels ecosistemes marins per a la salut i el benestar de les persones
Figura 1. Línies d’investigació en les quals s’engloba la nova línia de recerca d’Oceans i Salut Humana.
Ambient Oceanografia, meteorologia, climatologia, biologia marina
Recursos marins
Salut i benestar
Biologia pesquera, ecofisiologia, parasitologia, biotecnologia, etc.
Medicina, salut pública
Oceans i salut humana Preservació de la salut i dels ecosistemes marins
jecció de futur a l’àmbit local, nacional i internacional. Cal tenir en compte que la major part dels estudis s’han focalitzat a analitzar l’impacte de les activitats humanes i del canvi climàtic sobre els ecosistemes marins, però s’han fet relativament pocs estudis sobre els beneficis i riscos per a la salut procedents dels mars i oceans. Mentre que els Estats Units lideren aquest tipus d’estudis interdisciplinaris sobre oceans i salut humana amb accions com l’«Oceans and Human Health Initiative» (OHHI) (NIEHS, 2019), els Centers for Oceans and Human Health (COHH) (NOAA, 2010) i els projectes desenvolupats pel Center for Health and the Global Environment de la Universitat de Harvard (Harvard, 2019), a Europa aquestes iniciatives són encara escadusseres. El 2013, el European Marine Board (European Marine Board, 2015) va proposar que l’estudi de les relacions entre els oceans i la salut humana fos una línia estratègica d’investigació a Europa. Un dels centres de referència a Europa en aquesta temàtica és el European Centre for Environment & Human Health de la Universitat d’Exeter (Anglaterra), que ha estat impulsant nombrosos projectes sobre el mar i la salut com ara BlueHealth (BlueHealth, 2019) i SOPHIE (SOPHIE, 2019). A Catalunya i Espanya, aquest àmbit d’investigació no ha estat gairebé desenvolupat de manera integrada, tot i que hi ha diferents iniciatives i equips de recerca que treballen en la relació entre els oceans i la salut humana, entre els quals la nova Càtedra Oceans i Salut Humana (Lloret et al., 2020),
creada el 2017 per la Universitat de Girona (UdG) i l’Ajuntament de Roses, i que també compta amb el patrocini de la confraria de pescadors de Roses i del gremi de peixaters de Catalunya, i els grups de recerca Ecology of Harmful Algal Blooms de l’Institut de Ciències del Mar-CSIC i SeaHealth de l’Institut d’Ecologia Aquàtica de la UdG. Amb tot, les relacions entre els ecosistemes marins i la salut humana són encara força desconegudes arreu del món i en particular a Catalunya, i per això cal impulsar nous estudis.
2. Beneficis aportats pels mars i oceans a la salut i el benestar de les persones Els beneficis aportats pels ecosistemes marins a la salut i el benestar de les persones s’agrupen en tres grans grups principals (vegeu la taula 1).
Taula 1. Principals beneficis per a la salut procedents dels ecosistemes marins (elaboració pròpia) Producte/acció
Qualitat
Pesca: consum de productes del mar
Àcids grassos omega-3
Salut cardiovascular Prevenció de determinats tipus de càncer Salut mental
Proteïnes i vitamines (D, B12)
Seguretat alimentària Prevenció d’osteoporosi Salut cardiovascular
Minerals (seleni, iode)
Sistema immunològic Tiroides
Turisme marítim
Activitat física i relaxació
Salut física i mental
Biotecnologia marina
Potencial bioactiu d’algunes espècies marines
Descobriment de noves medicines anticancerígenes, antivíriques, antibacterianes, antifúngiques, etc.
Treballs de la Societat Catalana de Biologia, 70: 60-66
Revista TSCB 70.indd 61
2.1. El potencial bioactiu dels organismes marins com a font de noves medicines Un clar exemple dels beneficis per a la salut humana provinents del mar són els compostos bioactius. Força espècies marines produeixen aquests compostos bioactius, que tenen diferents propietats antibacterianes, antifúngiques, antivíriques, antiinflamatòries o anticancerígenes (Suarez-Jimenez et al., 2012). Aquests compostos bioactius produïts per espècies marines s’estan investigant per poder obtenir noves medicines que siguin útils per a combatre determinats tipus de càncer, infeccions i inflamacions, entre altres malalties (Menna, 2009). La branca de la ciència que investiga el potencial bioactiu de les espècies marines per descobrir noves medicines, anomenada biotecnologia marina, és d’una gran actualitat científica i de gran interès per a la indústria farmacèutica. Els compostos bioactius són molècules químiques essencials i no essencials trobades a la natura, que formen part de la cadena alimentària i que poden tenir efectes beneficiosos potencials sobre la salut humana. Aquestes molècules són produïdes per un ampli rang d’organismes, que van des de bacteris, fongs i algues microscòpiques fins a organismes complexos, com algues macroscòpiques, plantes i animals. Aquests compostos són molt variats: pèptids anticancerígens, caracteritzats per la seva acció citotòxica i antitumoral contra diferents línies de cèl·lules cancerígenes; metabòlits secundaris antibacterians i antivirals, toxines (i antitoxines) produïdes per diferents
Beneficis per a la salut
61
29/3/21 14:58
Josep Lloret i Arnau Carreño
espècies marines, com ara la tetrodotoxina produïda pel peix globus, i olis essencials, trobats especialment al peix i marisc, als quals la cultura popular atribueix nombroses propietats curatives i terapèutiques. Segons la seva diana, el potencial bioactiu pot ser classificat en diversos tipus, entre d’altres: antibacterià, antivíric, antitumoral, citotòxic, antifúngic, antioxidant, antiinflamatori i anticoagulant (Dhinakaran i Lipton, 2014; Swanson et al., 2012). A la Mediterrània, s’han trobat diferents espècies que tenen potencial bioactiu (vegeu, per exemple, Uriz et al., 1991; Carreño i Lloret, 2021), la majoria de les quals són organismes bentònics dels que s’ha aïllat compostos químics que els serveixen com a mitjà de defensa contra depredadors, organismes competidors, paràsits o microorganismes invasors. D’altra banda, els organismes marins viuen en una gran diversitat d’hàbitats en condicions diverses de pressió, salinitat, temperatura i il·luminació i, per tant, propicien la formació de diferents tipus de compostos bioactius exclusius (Uriz et al., 1991).
Potencial antibacterià Alguns organismes marins que conviuen amb bacteris a la seva superfície i que, per tant, tenen diversos tipus de mecanismes per a combatre’ls, podrien ser potencials candidats a ser investigats per la seva capacitat de produir compostos antibacterians (Kossuga et al., 2004; Manzo et al., 2011). Un exemple de peix que conté compostos amb activitat antibacteriana és el verat (Scomber scombrus) (Ennaas et al., 2015). Les infeccions bacterianes suposen actualment una de les majors causes de mortalitat en humans arreu del món. A més, el mal ús dels antibiòtics i l’aparició de «superbacteris» són actualment una de les majors preocupacions en medicina, ja que aquests bacteris són resistents a la majoria d’antibiòtics coneguts. Potencial antivíric Cada cop són més els estudis que apunten cap a les espècies marines com a font de nous medicaments amb potencial antivíric. Un exemple seria l'esqualamina obtinguda del fetge del tauró agullat (Squalus acanthias) i de la llampresa marina (Petromyzun marinus) (Zasloff et al., 2011). Actualment les infeccions víriques són un problema per a la salut de les persones arreu del món. Virus dels quals no s’ha descobert cap cura, com el VIH, o els virus de l’Ebola, de la grip aviar o de la grip A, són causants de milions de morts a tot el món.
62
Revista TSCB 70.indd 62
Potencial antioxidant La majoria d’organismes marins, en especial els peixos, tenen potencial antioxidant. La majoria d’estudis trobats sobre el potencial antioxidant estan focalitzats sobre els efectes dels olis provinents del múscul del peix sobre les espècies reactives de l’oxigen (ROS). Trobem, per exemple, aquesta propietat en el múscul de l’escórpora captinyós (Scorpaena notata). Probablement aquest potencial antioxidant és degut a l’acció dels àcids grassos omega-3 presents als peixos i invertebrats marins. Per altra banda, també s’han documentat propietats antioxidants d’altres molècules que no són omega-3 en els músculs de peixos condrictis com la tintorera (Prionace glauca) i la rajada o clavellada (Raja clavata), entre d’altres (Aissaoui et al., 2017; Lassoued et al., 2015).
no només pels seus efectes perjudicials, sinó també per les propietats beneficioses. Un exemple és la tetrodotoxina (TTX) produïda per alguns peixos globus, que està sent estudiada actualment com un potent tractament analgèsic contra el dolor produït per alguns tipus de tumors, i contra dolors neuropàtics com ara el dolor crònic.
Potencial antitumoral En els darrers anys s’estan descobrint noves molècules amb potencial antitumoral en una gran quantitat d’organismes sèssils, i aquests estan actualment en el punt de mira de les empreses farmacèutiques per tal de sintetitzar nous medicaments per lluitar contra el càncer. Dins d’aquest grup destaquen especialment les gorgònies del gènere Eunicella, com E. singularis i E. cavolini (Deghrigue et al., 2013).
Potencial antifúngic Els organismes sèssils o aquells que presenten mobilitat reduïda són els més susceptibles a patir infeccions per fongs, i sovint s’hi han trobat molècules amb potencial antifúngic, com per exemple als equinoderms Holothuria polii i Stichopus regalis (Ismail et al., 2008).
Potencial citotòxic Alguns estudis han avaluat el potencial citotòxic d’algunes espècies de cnidaris, com els fideus de mar (Anemonia sulcata) i la tomata de mar (Actinia equina). D’aquestes dues espècies s’han obtingut extractes aquosos que produeixen mort cel·lular a través de l’activació de la via de les caspases, més concretament la caspasa-3, una proteïna l’activació de la qual inicia el procés d’apoptosi, una mort cel·lular controlada (Silva et al., 2017). Potencial antiinflamatori Dins de les espècies en les quals s’ha descobert potencial antiinflamatori destaquen alguns peixos osteïctis com la bacora (Thunnus alalunga) i l’anguila japonesa (Anguilla japonica), que presenten aquesta activitat en extractes glandulars en el cas de la bacora i a les espines i en els òrgans interns en el cas de l’anguila japonesa (Azeem et al., 2010). L’anguila japonesa no és present a la Mediterrània, però obre la porta a l’estudi del potencial bioactiu de l’anguila europea (A. anguilla) que sí que està present a la Mediterrània. Biotoxines Les biotoxines produïdes per algunes espècies marines estan sent estudiades
Potencial anticoagulant Algunes espècies presenten potencial anticoagulant, com la llampresa marina (Petromyzun marinus), que té molècules amb potencial anticoagulant a la seva saliva. La llampresa utilitza aquestes propietats salivals per a alimentar-se de la sang dels peixos hostes, impedint que es coaguli la ferida produïda per la seva mossegada al lloc on s’adhereix.
2.2. Els aliments saludables procedents del mar Els factors ambientals, la nutrició i l’estil de vida tenen un paper important en les causes de moltes malalties, mentre que l’estructura genètica afecta la predisposició a patir alguns problemes de salut. La salut d’una persona depèn en part d’una dieta equilibrada, i per això l’alimentació i la salut humana interaccionen constantment. Els recursos pesquers (peixos, algues i invertebrats procedents de la pesca extractiva i de l’aqüicultura) no només ens proporcionen proteïna de qualitat sinó també una font important dels anomenats àcids grassos omega-3 (àcids grassos n-3 o ω-3). Els omega-3 són un tipus de greixos fonamentals en una dieta saludable perquè contribueixen a prevenir malalties cardiovasculars i determinats tipus de càncer, dues de les principals causes de mort per malaltia al món occidental. Les investigacions sobre els lligams dels omega-3 amb la salut de les persones són de gran actualitat, i a poc a poc van apareixent nous estudis sobre els beneficis que tenen en pacients amb d’altres malalties com la depressió, les malalties inflamatòries o les al·lèrgies (Bozzatello et al., 2016; Wani et al., 2015). Els àcids grassos omega-3 són un tipus de lípids que trobem als peixos i invertebrats ma-
Treballs de la Societat Catalana de Biologia, 70: 60-66
29/3/21 14:58
Beneficis dels ecosistemes marins per a la salut i el benestar de les persones
rins i les algues (macroalgues i fitoplàncton), bàsicament en forma d’àcid docosahexaenoic (DHA) i d’àcid eicosapentaenoic (EPA), així com també en alguns vegetals terrestres (com la soja, les olives, la grana de lli i les nous) en forma d’àcid alfa-linolènic (ALA). Els omega-3 DHA i EPA pertanyen a la categoria dels àcids grassos poliinsaturats de cadena llarga (en anglès PUFA), mentre que l’omega-3 ALA pertany a la categoria dels àcids grassos poliinsaturats de cadena curta. Els àcids grassos omega-3 DHA i EPA són essencials per al cos humà. El nostre cos no els pot sintetitzar i per tant els hem d’incorporar a través de la dieta. La seva ingesta a través dels productes del mar és en general beneficiosa per a la salut humana. Tot i que també podem obtenir aquests àcids grassos omega-3 DHA i EPA a través d’alguns vegetals terrestres (en forma d’ALA), l’eficàcia no és la mateixa. El cos humà pot convertir els àcids grassos ALA dels vegetals terrestres consumits en EPA i DHA, però la conversió és molt limitada i això es tradueix finalment en uns nivells d’EPA i sobretot de DHA al cos humà inferiors als que haguéssim obtingut amb la ingesta directa de peix o algues del mar. La ingesta d’àcids grassos omega-3 d’origen marí (DHA i EPA) contribueix a una dieta sana de diferents maneres. En primer lloc, diferents estudis demostren que el consum de peix ajuda a reduir la mortalitat per malalties cardiovasculars perquè aquests àcids grassos contribueixen a disminuir els nivells de triglicèrids, colesterol, agregació de les plaquetes i arrítmies (Swanson et al., 2012). Les malalties cardiovasculars constitueixen la primera causa de mortalitat al món occidental. Segons l’Organització Mundial de la Salut, el 2004 es varen produir aproximadament disset milions de morts a tot el món degut a problemes cardiovasculars (la qual cosa representa el 29 % del total de morts a tot el món aquell any). En segon lloc, protegeixen els consumidors contra el desenvolupament de determinats càncers, com ara el de mama i el de pròstata (Aucoin et al., 2017; Liang et al., 2019). El càncer és la segona causa de mort per malaltia al món occidental. Segons l’Organització Mundial de la Salut, el 2007 es varen produir aproximadament vuit milions de morts a tot el món degut al càncer (el que representa el 13 % del total de morts a tot el món aquell any), dos milions dels quals, a la Unió Europea. El càncer és una malaltia creixent arreu i s’estima que, aproximadament, un de cada tres euro-
peus desenvolupa algun tipus de càncer al llarg de la seva vida. També hi ha estudis que han relacionat la ingesta d’omega-3 d’origen marí amb una disminució dels símptomes depressius en adults i d’asma i al·lèrgies respiratòries en nens (Sán chez-Villegas et al., 2009; Wani et al., 2015). Hi ha treballs científics que demostren que els àcids grassos omega-3 també ajuden a combatre els processos inflamatoris i contribueixen a la salut de l’esquelet del nostre organisme (Dátilo et al., 2018). Finalment, s’està estudiant la seva possible acció beneficiosa en la prevenció d’altres malalties com la fibrosi quística i la demència. Cal tenir en compte que molts cops no es coneix bé els possibles mecanismes biològics (relació causa-efecte) d’aquests aspectes beneficiosos per a la salut. Amb tot, una de les majors evidències mèdiques dels beneficis dels omega-3 per a la salut l’aporten els estudis epidemiològics relacionats amb l’anomenada «dieta mediterrània», que és la que tradicionalment han seguit els pobles de la conca del Mediterrani i que és rica en productes del mar (i per tant en àcids grassos omega-3). S’ha demostrat de forma consistent que s’associa amb els resultats de salut favorables i una millor qualitat de vida (revisat per Lloret, 2010). Diversos estudis epidemiològics i observacionals suggereixen que aquest tipus de dieta pot protegir contra les malalties cròniques i reduir la mortalitat; de fet les nacions mediterrànies presenten taxes més baixes de malalties cardiovasculars i de càncer en comparació amb altres nacions. També s’ha associat una major adhesió a aquesta dieta amb la longevitat, la reducció dels trastorns depressius i la prevenció de la deficiència de ferro. Aquests estudis han demostrat que les poblacions que segueixen la dieta mediterrània, com la de Grècia (especialment Creta) i la del sud d’Itàlia, presenten una menor taxa de mortalitat per malalties cardiovasculars i una major esperança de vida en comparació amb altres poblacions com les de Finlàndia i els Estats Units, encara que aquestes últimes gaudeixen de millors condicions de vida i serveis mèdics. Tot i així, l’adhesió a aquest tipus de dieta ha disminuït. Tot i que l’omega-3 procedent del consum de peix i marisc sembla ser un aspecte determinant per a la salut dels pobles mediterranis, alguns autors han suggerit que el paper dels components de la dieta mediterrània en conjunt pot ser més important que l’efecte de cada component per separat. Per tant, pot haver-hi un cert grau de sinergia positiva mitjançant la combinació Treballs de la Societat Catalana de Biologia, 70: 60-66
Revista TSCB 70.indd 63
dels àcids grassos omega-3 procedents del peix amb altres ingredients com l’oli d’oliva, els fruits secs i les fruites, comuns en la dieta mediterrània. Les algues, que també són una font de salut, no se solen explotar comercialment al Mediterrani: en general no es fan servir directament com a aliment i només algunes espècies pertanyents al gènere Gracilaria s’utilitzen per a obtenir agar, un additiu emprat per la indústria alimentària.
2.3. Els beneficis per a la salut lligats a la vida a la costa i a la pràctica d’activitats turístiques al mar Moltes de les activitats d’esbarjo que es porten a terme al mar o a la vora del mar, des de passejar per la platja fins a la pràctica d’activitats esportives com el caiac, el busseig o nedar, comporten no només beneficis per a la salut física (bàsicament contribuint a prevenir les malalties cardiovasculars) sinó que també contribueixen al benestar emocional i aporten beneficis per a la salut mental tant de les persones sanes com de les que pateixen alguna malaltia de tipus psicològic (Dadvand et al., 2016; Carreño et al., 2020). Les activitats d’esbarjo que realitzen les persones al mar o a la costa esdevenen un factor important per a la seva salut física i mental (Burkart et al., 2016; Gascon et al., 2015). Alhora, és una nova manera de valorar el turisme marítim i costaner, que constitueix un sector cabdal per a l’economia de molts pobles litorals de la Mediterrània i d’arreu del món. El turisme marítim no només ha de ser sostenible, sinó que també pot ser saludable. És àmpliament sabut que la pràctica d’activitats físiques és, en si mateixa, beneficiosa per a la salut. L’esport, a part de mantenir-nos en bona forma física, ajuda a prevenir malalties tan greus com l’obesitat, les malalties coronàries i a reduir factors de risc cardiovascular i, inclús, hi ha alguns estudis que indiquen que pot tenir potencials efectes beneficiosos en la lluita contra diferents tipus de càncer (Kodama et al., 2006). Amb tot, els beneficis que poden comportar les activitats recreatives en un entorn costaner per al benestar mental de les persones encara no han estan ben estudiats. Hi ha estudis recents que indiquen que la pràctica d’esports en un entorn natural, sobretot a la costa i al mar, com ara la iniciativa blue gym (gimnàs blau), a part de contribuir en la salut física també ajuda en el benestar i la bona salut mental de les persones (Gascon et al., 2017; White et al., 2010). Així, aquestes activitats poden contribuir a prevenir malalties com la depressió i l’estrès, i ajudar a la recuperació
63
29/3/21 14:58
Josep Lloret i Arnau Carreño
d’altres malalties; inclús hi ha estudis que indiquen una possible millora cognitiva de les persones amb malalties tan greus com l’alzheimer. En aquest sentit, un estudi recent efectuat a la costa d’Anglaterra demostra que les persones que viuen prop de la costa duen un estil de vida més saludable en comparació amb les persones de l’interior, fan més activitat física i pateixen menys estrès i depressió (Bowen et al. 2014). Malgrat aquests estudis, encara no s’han investigat aquests efectes a les costes mediterrànies, on el turisme és un sector econòmic clau. Avui en dia la Mediterrània és una de les zones més turístiques del món, amb gairebé un 35 % de les arribades internacionals de turistes i els ingressos del sector a escala mundial. La costa mediterrània ofereix per a aquests visitants un entorn per a la relaxació i la pràctica d’activitats físiques, que es tradueix en plaer i que contribueix indirectament a la salut de les persones. La pràctica d’activitats recreatives al mar és un dels principals atractius per a aquests turistes que busquen gaudir de les nostres aigües. Entre elles trobem el submarinisme, la nàutica d’esbarjo, el caiac, la pesca recreativa, l’albirament de dofins i balenes o, fins i tot, passejar vora el mar. En aquest sentit, calen nous estudis per a demostrar la contribució del turisme a la salut de les persones de manera que puguem assolir un turisme sostenible i saludable. Finalment, cal destacar l’existència de zones on la gent viu força més anys que la mitjana, i sembla que amb millor qualitat de vida: són les anomenades blue zones, batejades per Dan Buettner, periodista de la revista National Geographic. Molts d’aquests espais blaus estan situats en ambients costaners, sovint illes, com ara Okinawa (Japó), Sardenya (Itàlia), Nicoya (Costa Rica) i Icària (Grècia). Tot i que encara avui en dia no està prou clar quins són els factors que fan que en aquests llocs la gent pugui viure més anys i amb millor qualitat de vida que la mitjana, s’han fet ja alguns estudis que poden donar pistes sobre els factors que determinen la longevitat i qualitat de vida de les persones (Poulain et al., 2013).
3. La vulnerabilitat dels beneficis procedents dels ecosistemes marins Hi ha diferents factors, tant de caràcter antropogènic com mediambiental, que fan perillar els beneficis que proporcionen els ecosistemes marins i al mateix temps provoquen un augment dels riscos sanitaris procedents d’aquests ecosistemes. Diferents factors d’origen antròpic i ambiental entre els quals la sobrepesca, la pressió turística a la costa i al mar, l’aqüicultura, la
64
Revista TSCB 70.indd 64
contaminació i el canvi climàtic estan amenaçant negativament la sostenibilitat dels ecosistemes marins, i comprometen així la seva contribució a una dieta saludable i al descobriment de nous fàrmacs (Font i Lloret, 2011; Lloret et al., 2016; Lloret et al., 2008; Lloret i Riera, 2008). Els ecosistemes marins poden esdevenir una font de risc per a la salut relacionada amb diferents factors (vegeu la taula 2) com la contaminació química, la contaminació per materials i els riscos o perills biològics, entre els quals els organismes patògens i les biotoxines marines (sobretot les proliferacions d’algues tòxiques a la costa i les toxines presents en alguns peixos i marisc que consumim, que poden produir diferents problemes de salut a alguns consumidors o banyistes). Aquests riscos, que poden afectar els humans a través de l’exposició a l’aigua contaminada o la seva ingesta o bé pel consum de productes pesquers contaminats, poden ser minimitzats amb una bona gestió dels recursos pesquers i dels ecosistemes marins, i de la zona costanera adjacent. Les reserves marines es postulen com a eina de conservació dels ecosistemes marins, especialment dels beneficis que aquests ens poden aportar. Cada cop hi ha més evidències científiques del paper important que tenen les reserves marines en el manteniment de la diversitat marina, la protecció dels hàbitats marins i la preservació dels recursos pesquers. Malgrat tot, encara no es té prou coneixement de com les reserves marines poden contribuir a preservar la salut de les persones a través de la provisió de béns i serveis indispensables per
a la seva salut i el benestar, com ara aliments saludables, lloc per a esbarjo o espècies amb possible interès farmacològic (és a dir amb potencial bioactiu). Les reserves marines, que ajuden a incrementar les abundàncies, talles i biomasses (i per tant les captures), no només contribueixen a preservar els estocs de peixos d’interès pesquer (sobretot els costaners), sinó que també ajuden a millorar les reserves energètiques dels peixos que hi viuen i per tant l’aportació d’àcids grassos omega-3 a la població. Se sap que, a les reserves marines on es practica una bona gestió pesquera, a la llarga la pesca artesanal (sovint l’única permesa a les reserves marines, juntament amb la recreativa) es veu afavorida perquè s’acaba capturant més peix i de més qualitat. Aquestes captures efectuades dins de les reserves marines i a prop d’elles constitueixen una font d’omega-3 de qualitat per a la població, un fet que sovint passa desapercebut però que li dona valor saludable i gastronòmic als productes pesquers obtinguts a la reserva. En un estudi que s’està efectuant al cap de Creus en el marc del projecte Omega-3 de GALP-Costa Brava, per exemple, hom ha demostrat que algunes espècies de pelàgics com la sardina, el seitó i el bonítol, i algunes de bentònics com el lluç o el congre són una font important d’àcids grassos omega-3 per a la població local. Així mateix, en un altre estudi portat a terme per la UdG i el CSIC al cap de Creus (Universitat de Girona, 2018) s’ha pogut comprovar com alguns hàbitats marins com el grapissar o maërl tenen unes caracterís-
Taula 2. Principals riscos per a la salut procedents dels ecosistemes marins (elaboració pròpia) Tipus Contaminació química
Producte Contaminants tòxics en productes de la pesca
Classe Metalls pesats Contaminants orgànics persistents (COP): dioxines, DDT, etc.
Radionúclids (radioactivitat)
Risc per a la salut Sistema immunològic Sistema nerviós Càncer Reproducció Càncer
Contaminació per materials
Materials sòlids, bàsicament plàstics
Deixalles Microplàstics Nanopartícules
Anomalies en l’esquelet Càncer Reproducció
Riscos o perills biològics
Biotoxines I: fitoplàncton tòxic marees roges (proliferacions d'algues tòxiques)
Toxines en organismes filtradors (PSP, DSP, etc.) Toxines del dinoflagel·lat Ostreopsis
Sistema nerviós Problemes gastrointestinals Al·lèrgies Problemes respiratoris
Biotoxines II: toxines marines emergents
Tetrodotoxina (TTX) Ciguatera Toxines produïdes per cianobacteris (saxitoxines, microcistines, anatoxines, etc.)
Sistema nerviós Problemes gastrointestinals
Organismes patògens
Bacteris (gènere Vibrio, bacteris resistents, etc.) Virus Paràsits (anisakis, etc.)
Problemes gastrointestinals Infeccions Al·lèrgies
Treballs de la Societat Catalana de Biologia, 70: 60-66
29/3/21 14:58
Beneficis dels ecosistemes marins per a la salut i el benestar de les persones
tiques especials que influeixen positivament sobre el contingut en àcids grassos omega-3 d’alguns peixos. Això és així perquè aquests peixos troben més aliment i de millor qualitat en aquests hàbitats «especials», la qual cosa repercuteix finalment amb la quantitat d’omega-3 que poden emmagatzemar. Per tant, la protecció d’hàbitats essencials esdevé una eina indispensable per a poder incrementar els àcids grassos omega-3 dels peixos, i perquè aquests arribin al consumidor de manera sostenible i saludable. Les reserves marines han de tenir un paper important no només per a permetre una reducció de l’esforç pesquer dins d’elles, sinó també per a mantenir uns hàbitats en bon estat que permetin als peixos viure, menjar i reproduir-se bé, i millorar la seva condició física (àcids grassos omega-3). Per altra banda, les reserves marines són un lloc ideal on poder practicar diferents activitats marines recreatives que són saludables per a la salut física i mental. Cal, però, regular bé l’afluència turística en aquests llocs tan fràgils, perquè si no els efectes positius s’esvaeixen. La pesca recreativa, la nàutica d’esbarjo, el caiac, el busseig o simplement passejar per la platja o la costa són exemples d’activitats recreatives que poden contribuir a la salut de les
persones, sobretot quan el medi marí i costaner està ben cuidat i regulat com ho hauria d’estar en les reserves marines. Les reserves marines constitueixen així una mena de «gimnàs blau» on poder realitzar activitats saludables i mediambientalment sostenibles i, per tant, s’han de preservar per a les futures generacions. Finalment, les reserves marines són llocs d’especial diversitat biològica amb una gran multitud d’espècies i hàbitats. Algunes d’aquestes espècies presenten potencial bioactiu, i són vulnerables a l’activitat humana i al canvi climàtic, que els poden afectar negativament, i això comportaria la pèrdua de la «farmàcia del mar». La conservació de les espècies vulnerables que presenten molècules amb possible potencial bioactiu mitjançant la creació de reserves marines és, doncs, del tot necessària i prioritària. En un futur, aquestes molècules podrien ser utilitzades per a descobrir nous fàrmacs antibiòtics, antivírics o antitumorals. És per això que caldria implementar noves mesures especials de protecció d’aquestes espècies, no només per a la seva conservació i per a mantenir la biodiversitat, sinó també per a contribuir en la medicina i poder continuar els estudis científics existents sobre les molè-
cules amb potencial bioactiu produïdes per algunes espècies marines. L’objectiu final és ser capaç de trobar la molècula amb potencial bioactiu, aïllar-la, sintetitzar-la químicament (per tal que no calgui explotar l’espècie de manera continuada) i fer-ne assajos clínics per garantir la seguretat i els efectes del nou fàrmac, sense que aquestes investigacions comportin cap dany a la població actual. Un exemple de reserva marina on trobem força espècies que poden tenir potencial bioactiu és el Parc Natural de Cap de Creus. Un estudi portat a terme al cap de Creus ha documentat que prop d’un 20 % de les 833 espècies de peixos i macroinvertebrats marins documentats al mateix Parc Natural podrien tenir algun tipus de potencial bioactiu (antifúngic, antibacterià, antitumoral, etc.), la qual cosa demostra que les reserves marines poden contribuir a protegir les espècies marines que en un futur poden donar lloc a noves medicines.
Research and Public Health, 17 (19): 7238. <http:// doi.org/10.3390/ijerph17197238>. Carreño, A.; Lloret, J. (2021). «The vulnerability of fish and macroinvertebrate species with bioactive potential in a Mediterranean marine protected area». Aquatic Conservation: Marine and Freshwater Ecosystems. <http://doi.org/10.1002/aqc.3498>. Chivian, E.; Bernstein, A. (2008). Sustaining life: How human health depends on biodiversity. Nova York: Oxford University Press. Dadvand, P. [et al.] (2016). «Green spaces and General Health: Roles of mental health status, social support, and physical activity». Environment International, 91: 161-167. <http://doi.org/10.1016/J.ENVINT.2016.02. 029>. Dátilo, M. N. [et al.] (2018). «Omega-3 from flaxseed oil protects obese mice against diabetic retinopathy through GPR120 receptor». Scientific Reports, 8 (1): 14318. <http://doi.org/10.1038/s41598-018-32553-5>. Deghrigue, M. [et al.] (2013). «Evaluation of antiproliferative and antioxidant activities of the organic extract and its polar fractions from the Mediterranean gorgonian Eunicella singularis». Environmental Toxicology and Pharmacology, 36 (2): 339-346. <http://doi. org/10.1016/j.etap.2013.04.014>. Dhinakaran, D. I.; Lipton, A. P. (2014). «Bioactive compounds from Holothuria atra of Indian ocean». SpringerPlus, 3: 673. <http://doi.org/10.1186/2193-1801-3 -673>. Ennaas, N. [et al.] (2015). «Production of antibacterial fraction from Atlantic mackerel (Scomber scombrus) and its processing by-products using commercial enzymes». Food and Bioproducts Processing, 96: 145153. <http://doi.org/10.1016/J.FBP.2015.07.014>. European Commission (2019). Blue Economy. <https:// webgate.ec.europa.eu/maritimeforum/en/frontpage/ 1141> [Consulta: 14 juny 2019].
European Marine Board (2013). Linking oceans and human health: A strategic research priority for Europe. Position paper 19 of the European Marine Board. Ostend: European Marine Board. — (2015). Oceans and human health. <http://www. marineboard.eu/oceans-and-human-health> [Consulta: 14 juny 2019]. Fleming, L. E. [et al.] (2006). «Oceans and human health: Emerging public health risks in the marine environment». Marine Pollution Bulletin, 53: 545-560. — (2014). «Oceans and human health: A rising tide of challenges and opportunities for Europe». Marine Environmental Research, 99: 16-19. <https://marineboard. eu/publications/strategic-research-agenda-oceans -and-human-health>. Font, T.; Lloret, J. (2011). «Biological implications of recreational shore angling and harvest in a marine reserve: The case of Cape Creus». Aquatic Conservation: Marine and Freshwater Ecosystems, 21 (2): 210-217. <http://doi.org/10.1002/aqc.1167>. Gascon, M. [et al.] (2015). «Mental health benefits of long-term exposure to residential green and blue spaces: A systematic review». International Journal of Environmental Research and Public Health, 12 (4): 4354-4379. <http://doi.org/10.3390/ijerph1204 04354>. — (2017). «Outdoor blue spaces, human health and well-being: A systematic review of quantitative studies». International Journal of Hygiene and Environmental Health, 220 (8): 1207-1221. <http://doi. org/10.1016/J.IJHEH.2017.08.004>. Gerber, L. R. [et al.] (2012). «Sustaining seafood for public health». Frontiers in Ecology and the Environment, 10: 487-493. Glibert, P. M. [et al.] (2018). «Introduction to the global ecology and oceanography of harmful algal blooms, 3-7. Suïssa: Springer Link.
Agraïments Volem donar les gràcies als editors de la revista pels seus comentaris i correccions. A. Carreño gaudeix d’una beca predoctoral finançada per l’Ajuntament de Tossa de Mar i la Càtedra Oceans i Salut Humana.
Bibliografia Aissaoui, N. [et al.] (2017). «Two novel peptides with angiotensin I converting enzyme inhibitory and antioxidative activities from Scorpaena notata muscle protein hydrolysate». Biotechnology and Applied Biochemistry, 64 (2): 201-210. <http://doi.org/10. 1002/bab.1478>. Allen, J. I. (2011). «Marine environment and human health: An overview». A: Hester, R. E.; Harrison, R. M. (ed.). Marine pollution and human health. Londres: Royal Society of Chemistry (Issues in Environmental Science and Technology; 34), 1-24. Aucoin, M. [et al.] (2017). «Fish-derived omega-3 fatty acids and prostate cancer: A systematic review». Integrative Cancer Therapies, 16 (1): 32-62. <http://doi. org/10.1177/1534735416656052>. Azeem, A. K. [et al.] (2010). «Anti-inflammatory activity of the glandular extracts of Thunnus alalunga». Asian Pacific Journal of Tropical Medicine, 3 (10): 794-796. <http://doi.org/10.1016/S1995-7645(10)60190-3>. BlueHealth (2019). BlueHealth: Linking environment, climate & health. <https://bluehealth2020.eu/> [Consulta: 14 juny 2019]. Bowen, R. [et al.] (ed.) (2014). Seas, society and human well-being. Regne Unit: Wiley Publishers. Bozzatello, P. [et al.] (2016). «Supplementation with omega-3 fatty acids in psychiatric disorders: A review of literature data». Journal of Clinical Medicine, 5 (8), 67: 1-26. <http://doi.org/10.3390/jcm5080067>. Burkart, K. [et al.] (2016). «Modification of heat-related mortality in an elderly urban population by vegetation (urban green) and proximity to water (urban blue): Evidence from Lisbon, Portugal». Environmental Health Perspectives, 124 (7): 927-934. <http://doi. org/10.1289/ehp.1409529>. Carreño, A. [et al.] (2020). «The beneficial effects of short-term exposure to scuba diving on human mental health». International Journal of Environmental
Treballs de la Societat Catalana de Biologia, 70: 60-66
Revista TSCB 70.indd 65
65
30/3/21 14:14
Josep Lloret i Arnau Carreño
Harvard T. H. Chan School of Public Health (2019). C-CHANGE: Center for the Climate, Health And the Global Environment. <https://www.hsph. harvard.edu/c-change/?utm_source=os&utm _campaign=redirect_analysis> [Consulta: 14 juny 2019]. Ismail, H. [et al.] (2008). «Antifungal activity of aqueous and methanolic extracts from the Mediterranean sea cucumber, Holothuria polii». Journal de Mycologie Médicale, 18 (1): 23-26. <http://doi.org/10.1016/j. mycmed.2008.01.002>. Kodama, S. [et al.] (2006). «Exercise training for ameliorating cardiovascular risk factors-focusing on exercise intensity and amount». International Journal of Sport and Health Science, 4: 325-338. <http://doi. org/10.5432/ijshs.4.325>. Kossuga, M. H. [et al.] (2004). «(2 S, 3 R)-2-aminododecan-3-ol, a new antifungal agent from the ascidian Clavelina oblonga». Journal of Natural Products, 67 (11): 1879-1881. <http://doi.org/10.1021/np0497 82q>. Lassoued, I. [et al.] (2015). «Characterization, antioxidative and ACE inhibitory properties of hydrolysates obtained from thornback ray (Raja clavata) muscle». Journal of Proteomics, 128: 458-468. <http://doi. org/10.1016/j.jprot.2015.05.007>. Liang, P. [et al.] (2019). «Role of host GPR120 in mediating dietary omega-3 fatty acid inhibition of prostate cancer». JNCI: Journal of the National Cancer Institute, 111 (1): 52-59. <http://doi.org/10.1093/jnci/ djy125>. Lloret, J. (2010). «Human health benefits supplied by Mediterranean marine biodiversity». Marine Pollution Bulletin, 60: 1640-1646. Lloret, J. [et al.] (2008). «Spearfishing pressure on fish communities in rocky coastal habitats in a Mediterranean marine protected area». Fisheries Research, 94 (1), 84-91. <http://doi.org/10.1016/J.FISHRES.2008. 07.002>. — (2014). «Estimating recreational fishing tackle loss in Mediterranean coastal areas: Potential impacts on
66
Revista TSCB 70.indd 66
wildlife». Aquatic Ecosystem Health & Management, 17 (2): 179-185. <http://doi.org/10.1080/14634988.20 14.910070>. — (2020). The Roses Ocean and Human Health Chair: A new way to engage the public in oceans and human health challenges. International Journal of Environmental Research and Public Health, 17: 5078. <http:// doi.org/10.3390/ijerph17145078>. Lloret, J.; Riera, V. (2008). Evolution of a Mediterranean coastal zone: Human impacts on the marine environment of Cape Creus. Environmental Management, 42 (6): 977-988. <http://doi.org/10.1007/s00267-008 -9196-1>. Manzo, E. [et al.] (2011). «Bioactive terpenes from Spongia officinalis». Journal of Natural Products, 74 (5): 1241-1247. <http://doi.org/10.1021/np200226u>. Menna, M. (2009). «Antitumor potential of natural products from Mediterranean ascidians». Phytochemistry Reviews, 8 (2): 461-472. <http://doi.org/10.1007/ s11101-009-9131-y>. National Research Council (1999). From monsoons to microbes: Understanding the ocean’s role in human health. Washington DC: The National Academies Press. NIEHS (2019). Oceans and human health. <https://www. niehs.nih.gov/research/supported/centers/oceans/ index.cfm> [Consulta: 14 juny 2019]. NOAA (2010). Oceans and human health initiative. <https://www.eol.ucar.edu/projects/ohhi2/about/> [Consulta: 14 juny 2019]. Poulain, M. (2013). «The blue zones: Areas of exceptional longevity around the world». A: Vienna yearbook of population research, 11: 87-108. Àustria: Austrian Academy of Sciences Press. Sánchez-Villegas, A. [et al.] (2009). «Association of the Mediterranean dietary pattern with the incidence of depression». Archives of General Psychiatry, 66 (10): 10901098. <http://doi.org/10.1001/archgenpsychiatry. 2009.129>. Silva, T. [et al.] (2017). «In vitro anti-inflammatory and cytotoxic effects of aqueous extracts from the edible
sea anemones Anemonia sulcata and Actinia equina». International Journal of Molecular Sciences, 18 (3): 653. <http://doi.org/10.3390/ijms18030653>. SOPHIE (2019). Seas, oceans & public health in Europe. <https://sophie2020.eu/> [Consulta: 14 juny 2019]. Suarez-Jimenez, G.-M. [et al.] (2012). «Bioactive peptides and depsipeptides with anticancer potential: Sources from marine animals». Marine Drugs, 10 (5): 963-986. <http://doi.org/10.3390/md10050963>. Swanson, D. (2012). «Omega-3 fatty acids EPA and DHA: Health benefits throughout life». Advances in Nutrition, 3 (1): 1-7. <http://doi.org/10.3945/an.111.000893>. Tacon, A. G. J.; Metian, M. (2013). «Fish matters: Importance of aquatic foods in human nutrition and global food supply». Reviews in Fisheries Science, 21: 22-38. Universitat de Girona (2018). Projecte La Caixa – Cap de Creus. <http://www.oceanshealth.udg.edu/ca/ la-caixa-cap-de-creus.html> [Consulta: 1 juny 2019]. Uriz, M. J. [et al.] (1991). «An approach to the ecological significance of chemically mediated bioactivity in Mediterranean benthic communities». Marine Ecology Progress Series, 70 (2): 175-188. <http://doi. org/10.3354/meps070175>. Walsh, P. J. [et al.] (ed.) (2008). Oceans and human health: Risks and remedies from the seas. Àmsterdam: Elsevier. Wani, A. L. [et al.] (2015). «Omega-3 fatty acids and the treatment of depression: A review of scientific evidence». Integrative Medicine Research, 4 (3): 132-141. <http://doi.org/10.1016/j.imr.2015.07.003>. White, M. [et al.] (2010). «Blue space: The importance of water for preference, affect, and restorativeness ratings of natural and built scenes». Journal of Environmental Psychology, 30 (4): 482-493. <http://doi. org/10.1016/J.JENVP.2010.04.004>. Zasloff, M. [et al.] (2011). «Squalamine as a broad-spectrum systemic antiviral agent with therapeutic potential». Proceedings of the National Academy of Sciences, 108 (38): 15978-15983. <http://doi.org/10.1073/ pnas.1108558108>.
Treballs de la Societat Catalana de Biologia, 70: 60-66
30/3/21 14:14
Flaix de ciència
Líquens de Barcelona, un projecte de ciència ciutadana amb la col·laboració de Ciència en societat, IRBio i Natusfera Laura Force Seguí
Líquens de Barcelona és un projecte de ciència ciutadana que va néixer amb l’objectiu de mapar els líquens dels arbres de la ciutat de Barcelona i relacionar-los amb la qualitat atmosfèrica, fixant-nos concretament en deu espècies amb diferents graus de tolerància a la contaminació. Al llarg del primer any del projecte en actiu (20172018), hem ampliat l’horitzó per registrar alhora tota la diversitat de líquens que trobem a la ciutat. Hem col·laborat amb centres cívics de Barcelona i el CCCB amb l’exposició «Després de la fi del món», i amb Bioblitz Barris en diferents activitats de biodiversitat urbana. Actualment el projecte forma part de l’Oficina de Ciència Ciutadana de Barcelona.
posar el terme polisimbiosi (Cengia-Sambo, 1925, 1931). Aquesta idea potser va quedar encara més reforçada amb el sorprenent article de Spribille publicat a Science l’estiu del 2016, que confirmava també la presència de llevats de basidiomicets en la simbiosi. Sorprenent, ja que va revolucionar els diaris amb titulars com el d’El País, «Los líquenes ya no son lo que estudiaste». Podríem seguir posant damunt la taula si es tracta o no d’un mutualisme en què surten beneficiats tots els socis o bé es tracta d’una esclavitud per a l’alga (Schwendener, 1869), però quedem-nos aquí de moment i mirem per què ens interessen a Barcelona. Els bioindicadors són organismes molt sensibles als canvis en factors mediambientals del seu entorn. Ja l’any 1866, Nylander, un dels pares de la liquenologia, parava atenció a la disminució de la diversitat de líquens al Jardí
de Luxemburg i l’atribuïa a la qualitat atmosfèrica. Des d’aleshores, i sobretot des dels seixanta del segle passat, podem dir que els líquens són els bioindicadors més àmpliament usats en l’ecosistema terrestre (Nimis et al., 2002). Fins al punt que la Unió Europea ha triat els líquens epífits (aquells que viuen sobre les escorces dels arbres) com a bioindicadors de la qualitat atmosfèrica i n’ha publicat un protocol d’observació. Si amb la col·laboració ciutadana i aplicacions com Natusfera aconseguim mapar la diversitat liquènica que trobem als arbres de Barcelona, podrem tenir un mapa de la qualitat atmosfèrica de la ciutat molt més fi del que podríem dibuixar a partir de les estacions de control fisicoquímic de l’aire, que mesuren només algunes substàncies. A Líquens de Barcelona hem emprès camí a través d’activitats de mapatge i tallers, a partir
Malgrat que és possible que els que llegiu aquestes línies conegueu els líquens i la definició clàssica dels llibres de text (una simbiosi estable entre un fong i una alga verda o un cianoprocariota), no són gaire populars. Líquens de Barcelona ve a intentar fer-los lluir i marcar tendència: hi desfilen vestits amb la consideració de bioindicadors —concepte que sens dubte és a l’ordre del dia—, amb el reconeixement del seu valor en la biodiversitat urbana i la curiosa interacció amb elements tan nostres com teulades, murs de morter o làpides de cementiri. Tot això, a més, de la mà de científics i ciutadans. Com més coneixem els líquens, més difícil és trobar una definició simple i curta que no sigui una mera caricatura. Possiblement la més estesa és la de Hawksworth i Honegger (1994), que els defineixen com un mutualisme ecològicament obligat i estable entre un micobiont (part fúngica) i un fotobiont (algues o cianobacteris fotosintetitzadors). Ara bé, no contemplen que també hi intervenen bacteris, fet que va portar alguns autors a pro-
Figura 1. Lecanora campestris a les escales dels jardins del Palau de Pedralbes. Fotografia: Jaume Piera.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 67
67
29/3/21 14:58
Líquens de Barcelona, un projecte de ciència ciutadana
dels quals hem advertit també els riscos socioculturals a què sotmetem els líquens en superfícies com teules, baranes i d’altres elements arquitectònics. Revertir la idea que fan brut, quan en realitat són la «pell» que protegeix els monuments o el descans dels nostres morts, i emfatitzar el valor d’aquesta biodiversitat, ha esdevingut alhora un dels nostres objectius, més enllà de quedar-nos tan sols amb el potencial dels epífits per parlar-nos de la qualitat atmosfèrica. Amb tot, per tant, si alguna cosa hem après, és la discreció obligada amb què viuen els líquens als carrers de la capital per causa de la contaminació i el desconeixement. Entre tots, però, haurem d’intentar alliberar-los de la modèstia.
Figura 2. Lecanora campestris a les escales dels jardins del Palau de Pedralbes. Fotografia: Laura Force.
Bibliografia Cengia-Sambo, M. (1925). «Ancora della polisimbiosi nei licheni ad alghe cianoficee. I batteri simbionti». Atti Soc. Ital. Sci. Nat., 64: 191. — (1931). «Biologie des lichens. Les substances carbohydratées dans les lichens et la fonction de fixation de l’azote des céphalodies». Boll. Sez. Ital. delle Soc. Internaz. di Microbiol., 11: 1-8. Hawksworth, D. L.; Honegger, R. (1994). «The lichen thallus: A symbiotic phenotype of nutritionally specialized fungi and its response to gall producers». A: Williams, M. A. J. (ed.). Plant galls: Organisms, interactions, populations. Oxford: Clarendon Press; Nova York: Oxford University Press, 77-98. Nimis, P. L. [et al.] (2002). «Monitoring with Lichens – Monitoring Lichens». A: Nimis P. L. [et al.] (ed.). Monitoring with lichens – Monitoring lichens. Dordrecht: Springer. (NATO Science Series; IV. Earth and Environmental Sciences; 7) Sampedro, J. (2016). «Los líquenes ya no son lo que estudiaste». El País (21 juliol). <https://elpais. com/elpais/2016/07/21/ciencia/1469116343_205469.html>. Schwendener, S. (1869). Die Algentypen der Flechtengonidien. Basilea: Universitætsbuchdruckerei von C. Schultze. Spribille, T. [et al.] (2016). «Basidiomycete yeasts in the cortex of ascomycete macrolichens». Science, 353 (6298): 488-492.
68
Revista TSCB 70.indd 68
Treballs de la Societat Catalana de Biologia
30/3/21 14:14
Flaix de ciència
Què s’amaga entre la posidònia? La influència humana en l’ecosistema de les praderies de posidònia Guillem Castro i Tina Mendoza
La costa catalana conté gran varietat d’ecosistemes marins que es veuen influenciats per nombrosos factors propis del nostre litoral. L’activitat humana i la influència de ciutats, ports i altres construccions antròpiques comprometen els hàbitats costaners i posen en perill la riquesa biològica. Al sud de Catalunya, l’arribada al mar de la serralada Prelitoral, al coll de Balaguer, crea una costa formada per petites cales, on sovint el bosc arriba a la vora. La localitat de l’Ametlla de Mar es troba ubicada en aquesta zona i posseeix vint quilòmetres de costa amb vint-i-set cales i platges, i té la particularitat de ser rica en Posidonia oceanica. A causa de les seves atractives característiques, té una gran afluència turística que podria malmetre el seu ric ecosistema. L’objectiu era realitzar un estudi observacional descriptiu de les característiques de la fauna i la flora d’aquest segment de la costa catalana i es va formular la hipòtesi que la influència humana altera la diversitat de la fauna marina de les cales del municipi de l’Ametlla de Mar. L’estudi es va centrar en cales que fossin representatives de la totalitat de la costa del terme. Se’n van escollir nou, en concret, de nord a sud, cala Vidre, Xelín, Estany Tort, cala del Cementiri, Santes Creus, cala Llenya, Estany Podrit, cala Punta de l’Àliga i cala Àliga, que es troben repartides al llarg dels vint quilòmetres. L’ajuntament de la localitat les classifica en no verges, aquelles que estan sotmeses a la intervenció humana, que són cinc de les mencionades, i verges, les altres quatre, en què l’acció de l’home és poca o nul·la. Es van seleccionar aquestes perquè també eren representatives en els altres elements que es volien considerar: el substrat de la platja i les característiques geogràfiques d’aquesta, o sigui, si era arenosa o rocosa, i si era oberta o tancada. En aquesta zona hi ha un element comú, la Posidonia oceanica, la qual és un element clau en l’ecosistema. La posidònia és una planta aquàtica, i per tant té arrel, tija, fulles, flors i fruits. Per-
Figura 1. Nombre d’espècies marines observades en cada cala. Autor: Guillem Castro.
tany al gènere Posidoniaceae i és endèmica del Mediterrani. Gràcies al seu creixement clonal, és un dels organismes més longeus d’aquest mar. Com que necessita realitzar la fotosíntesi, viu en aigües transparents i ben il·luminades. Acostuma a arrelar en fons de sorra, tot i que també se la pot trobar sobre fons de roca o fangosos. Durant els mesos de juliol i agost, es van realitzar dues immersions diàries en cales diferents entre les 10.00 i les 12.00 h, d’una durada d’entre trenta i quaranta-cinc minuts. Es fotografiaven tots els organismes observats. Com a màxim, s’arribava als tres metres de profunditat. En cas de mal temps, poca visibilitat o d’haver-hi un excés de persones, s’ajornava la immersió. En acabar, es registraren totes les dades. La distància de la línia de la costa a la boca de la cala es va anomenar llargària. Si el valor obtingut de dividir la llargària per l’amplada era < 0,5, la cala es considerava oberta, i si era > 0,5, tancada. En els resultats obtinguts no hem trobat diferències significatives en la varietat d’organismes de les diferents cales. La hipòtesi que plantejàvem al principi no es va demostrar, ja que segons les dades recollides, la influència humana no altera la
Bibliografia Boudouresque, Ch. [et al.] (2016). «The necromass of the Posidonia oceanica seagrass meadow: Fate, role, ecosystem services and vulnerability». Hydrobiologia [en línia]. DOI: 10.1007/s10750-015-2333-y. Marine Biodioversity Wiki. «Posidonia oceanica» [en línia]. <http://www.marbef.org/wiki/ Posidonia_oceanica_(Linnaeus)_Delile> [Consulta: 18 agost 2017]. «Platges i cales». A: L’Ametlla de Mar [en línia]. Web de turisme de l’Ametlla de Mar. <http:// www.ametllamar.cat/turisme/ca/turisme/ platges-i-cales/> [Consulta: 27 juliol 2017].
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 69
presència i diversitat de fauna marina. De fet, les platges i cales no verges tenien més diversitat que les verges, tot i que la diferència era mínima. Tampoc no es van trobar diferències significatives entre les cales rocoses i les arenoses, encara que en les primeres trobem més diversitat d’organismes, en concret d’algues, peixos, equinoderms, crustacis, poliquets i ctenòfors. Es va trobar més diversitat de mol·luscs i esponges en les cales obertes i més de les altres famílies en les tancades, excepte pel que fa als cnidaris, dels quals se’n va trobar la mateixa quantitat en tots dos tipus de cales. No hem trobat diferències clares entre la varietat d’organismes de les diferents cales, la qual cosa ens permet concloure que l’ecosistema de les praderies de posidònia de l’Ametlla de Mar és tan ric i homogeni, que trobem les espècies repartides per igual en la totalitat d’aquesta costa. Si es té en compte que és un municipi turístic, descobrim que es tracta d’un turisme net i sostenible que no afecta l’ecosistema marí.
Guillem Castro (Riudoms, 2000) va ser alumne de l’Institut d’Ensenyament Secundari Joan Guinjoan de Riudoms i va realitzar aquest treball de recerca tutoritzat per Tina Mendoza. Actualment estudia biologia a la Facultat de Ciències de la Universitat de Girona.
69
29/3/21 14:58
Flaix de ciència
Mycoplasma pneumoniae : quan Mycoplasma pneumoniae: quan menut no implica simplemenut no implica simple Verónica Lloréns Rico
El bacteri Mycoplasma pneumoniae és un organisme amb un dels genomes més xicotets dels éssers vius. El seu genoma està format per menys d’un milió de bases d’ADN, «lletres» que conformen el codi que conté tota la informació que necessita un organisme per a créixer, reproduir-se i poder respondre a diferents estímuls o situacions d’estrès. En comparació, el genoma humà conté més de tres mil milions de bases. Sent tan xicotet, és un model molt interessant per a poder estudiar aspectes bàsics de la biologia dels bacteris, o fins i tot d’organismes més complexos. Un d’aquests aspectes és com pot un bacteri tan aparentment simple respondre a diferents estímuls externs.
tots els organismes hi ha unes proteïnes especials, anomenades factors de transcripció, que controlen el pas d’ADN a ARN. Cada factor de transcripció s’especialitza en un grup de gens en concret, habitualment de funcions relacionades. M. pneumoniae, que de forma natural es pot trobar infectant els pulmons en humans, ha de ser capaç de respondre a canvis de temperatura, disponibilitat de nutrients, tractament amb antibiòtics, etc. No obstant això, aquest bacteri conté menys de deu factors de transcripció, mentre que altres bacteris en contenen molts més (Escherichia coli, un altre bacteri model al laboratori, en té més de dos-cents). De fet, inicialment es va proposar que M.
pneumoniae era incapaç de regular la transcripció dels seus gens a ARN, i que aquest era un procés purament atzarós. Més endavant, un estudi en profunditat de la transcripció en aquest bacteri va revelar que era capaç de coordinar respostes concretes i complexes davant diferents estímuls, de forma que aquest comportament no es podia deure a l’atzar (Güell et al., 2009). Com un bacteri aparentment tan simple podia coordinar aquest tipus de respostes amb tan pocs factors de transcripció era un misteri.
Els primers sospitosos: els ARN no codificants Més enllà dels factors de transcripció, hi ha altres entitats que poden controlar el procés
El genoma, com un llibre d’instruccions, conté tota la informació per a sostenir la vida d’un organisme. Tot i això, no totes aquestes instruccions s’han d’executar al mateix temps. Per exemple, els éssers humans estem formats per bilions de cèl·lules de diferents tipus: neurones, cèl·lules epitelials, musculars… Totes contenen el mateix genoma, però les parts que hi són actives a cada tipus de cèl·lula són diferents. Fins i tot, una mateixa cèl·lula pot activar o inactivar determinades funcions codificades al seu genoma per a poder respondre a canvis a l’entorn. Per a activar una funció concreta, com per exemple la producció d’insulina a les cèl·lules pancreàtiques, el gen (un fragment delimitat del genoma) responsable d’aquesta funció s’ha de transcriure d’ADN a ARN, el qual actua com a missatger de la informació genètica. El missatger d’ARN després es tradueix per a donar lloc a una proteïna. Les proteïnes, finalment, són les encarregades d’executar les funcions codificades al genoma. Aquests dos processos, transcripció i traducció, són universals a tots els éssers vius i han d’estar finament controlats per a assegurar el seu correcte funcionament. És per això que a
70
Revista TSCB 70.indd 70
Figura 1. Efectes dels ARN antisentit. Dalt, esquema dels possibles efectes dels ARN antisentit, en cas que es troben en concentració suficient a les cèl·lules. Baix, esquema del que ocorre en M. pneumoniae, on les concentracions d’ARN missatger i antisentit són tan baixes que en unes cèl·lules s’hi produeix només ARN missatger, que es tradueix a proteïnes, mentre que en altres cèl·lules només s’hi produeix ARN antisentit, que no es tradueix i no afecta les proteïnes ja existents (elaboració pròpia).
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Mycoplasma pneumoniae: quan menut no implica simple
de transmissió d’informació d’ADN a ARN i proteïna: els denominats ARN no codificants. Aquests són fragments d’ARN que no es tradueixen a proteïnes, i poden regular l’expressió de gens per diversos mecanismes: alterant l’estabilitat dels missatgers d’ARN (fent-los més estables per a facilitar la traducció a proteïna o bé degradant-los) o controlant el reconeixement dels missatgers per part dels ribosomes, els complexos encarregats de la traducció. M. pneumoniae conté nombrosos ARN no codificants, la majoria dels quals són de tipus antisentit, que es transcriuen a la cadena d’ADN oposada a un determinat gen. Perquè un ARN antisentit regule l’expressió d’un gen, és necessari que s’emparelle amb l’ARN missatger d’aquest, i es forme un híbrid missatger-antisentit (vegeu la figura 1).
funcions s’agrupen per tal que un sol factor de transcripció controle la transcripció de tots junts en bloc. Aquests blocs s’anomenen operons. L’extensió dels operons normalment està delimitada per senyals d’iniciació de la transcripció, als quals s’uneixen la proteïna ARN-polimerasa i els factors de transcripció per a iniciar la producció d’ARN, i senyals de terminació de la transcripció. Tradicionalment, els operons es consideraven entitats fixes, però els primers estudis globals de transcripció en bacteris, incloent M. pneumoniae, revelaren que els operons tenien un comportament dinàmic i que la seua extensió podia variar en funció de les condicions. Fent servir M. pneumoniae, vam descobrir que la temperatura juga un paper essencial. A
temperatures altes, causants d’estrès per a M. pneumoniae, la proteïna ARN-polimerasa és menys processiva, detecta senyals de terminació fins i tot dèbils, i els operons són més curts. Pel contrari, en condicions per davall de la temperatura fisiològica, la polimerasa és més processiva, és a dir, més propensa a ignorar senyals de terminació. Açò dona lloc a molècules d’ARN més llargues, que comprenen més d’un operó, i amb menys factors de transcripció es poden activar més gens a la vegada (vegeu la figura 2). D’aquesta forma, l’ordre no només dels gens sinó dels operons és determinant per al control de l’expressió de determinades funcions (Junier et al., 2016). De fet, estudis recents determinaren que aquesta organització afecta el genoma sencer, que es pot dividir en grans dominis on la expressió de gens és altament coordinada (Trussart et al., 2017).
Vam quantificar el nombre de molècules de tots els ARN missatgers i ARN antisentit de M. pneumoniae, i vam descobrir que el nombre d’aquests era molt baix, especialment el nombre d’ARN antisentit. Normalment, es podia trobar un missatger d’un gen concret a una de cada deu cèl·lules de M. pneumoniae, i l’ARN antisentit que el complementa, només a una de cada cent cèl·lules. Sospitàvem que amb un nombre tan baix, la probabilitat de formar híbrids seria quasi inexistent. Vam validar les nostres hipòtesis amb models matemàtics i de forma experimental (Lloréns-Rico et al., 2016), i vam demostrar que almenys a M. pneumoniae la majoria dels ARN antisentit no podien tenir funcions reguladores, ja que a nivells fisiològics es troben a molt baixes concentracions (vegeu la figura 1). Aquesta observació s’estén a molts altres bacteris, ja que en anteriors estudis s’havia experimentat amb ARN antisentit a concentracions molt elevades que afavorien la formació dels híbrids la qual cosa no ocorria en condicions fisiològiques.
L’ordre dels operons sí que altera el producte Als bacteris, l’ordre dels gens al genoma no és trivial. Normalment, gens amb les mateixes
Figura 2. Efecte de la temperatura i l’ordre dels operons. La figura representa dos operons amb senyals de terminació forts (hexàgons grans) al final de cada operó i senyals dèbils (hexàgons menuts) dins dels operons. A temperatures fisiològiques, l’ARN-polimerasa reconeix els senyals de terminació forts, de forma que cada ARN missatger conté els gens d’un sol operó. A temperatures altes, la polimerasa detecta senyals de terminació dèbils, i els operons resultants són mes curts. A temperatures baixes, la polimerasa és més processiva i pot ometre senyals de terminació forts, i en resulten superoperons molt llargs (elaboració pròpia).
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 71
71
29/3/21 14:58
Mycoplasma pneumoniae: quan menut no implica simple
Altres mecanismes Hi ha altres mecanismes de regulació que, tot i que s’havien descrit prèviament en altres organismes, han estat validats a M. pneumoniae. Un d’aquests és el control de la iniciació de la transcripció. Les bases o lletres que componen les molècules d’ARN han d’estar disponibles en el moment de començar la producció de missatgers. A M. pneumoniae, la seqüència dels ARN missatgers relacionats amb creixement comença normalment per dues bases GC (guanosina i citosina). Aquestes es troben en gran concentració dins de la cèl·lula quan el bacteri creix de forma exponencial, però no quan el creixement s’estanca. Així, quan s’arriba a la fase estacionària, com que aquestes bases no estan disponibles per a començar la
producció d’ARN de gens relacionats amb el creixement, aquestes funcions s’inactiven de forma molt senzilla i sense necessitat de factors de transcripció. Altres mecanismes de regulació estudiats en altres organismes impliquen la iniciació de la transcripció o la degradació de les molècules d’ARN (Miravet-Verde et al., 2017).
Com reconstruïm el puzle Amb tots aquests mecanismes en ment, és clar que M. pneumoniae no és un organisme senzill, tot i tenir un genoma xicotet i tan sols deu factors de transcripció. Per això, fent servir tots els experiments que s’havien dut a terme al laboratori durant més de deu anys,
Bibliografia Güell, M. [et al.] (2009). «Transcriptome complexity in a genome-reduced bacterium». Science, 326 (5957): 1268-1271. Junier, I. [et al.] (2016). «Insights into the mechanisms of basal coordination of transcription using a genome-reduced bacterium». Cell Systems, 2 (6): 391-401. Lloréns-Rico, V. [et al.] (2016). «Bacterial antisense RNAs are mainly the product of transcriptional noise». Science Advances, 2 (3): e1501363. Miravet-Verde, S., [et al.] (2017). «Alternative transcriptional regulation in genome-reduced bacteria». Current opinion in microbiology, 39: 89-95. Trussart, M. [et al.] (2017). «Defined chromosome structure in the genome-reduced bacterium Mycoplasma pneumoniae». Nature communications, 8: 14665.
72
Revista TSCB 70.indd 72
vam construir un model estadístic que quantificava la importància de cada mecanisme de regulació per a, així, poder entendre millor com funciona aquest bacteri. Vam poder descobrir que a M. pneumoniae el regulador més potent és l’organització del genoma en grans dominis, seguida de factors de transcripció i altres proteïnes i, finalment, altres elements com la concentració de nucleòtids a la cèl·lula. Aquests descobriments tenen implicacions no només per a entendre un dels processos més bàsics de la biologia, sinó també a l’hora de modificar i «enginyeritzar» aquest bacteri per a obtenir-ne aplicacions biomèdiques, com l’obtenció de vacunes a mida.
Verónica Lloréns Rico (València, 1989) és llicenciada en biotecnologia per la Universitat Politècnica de València (2011). Posteriorment va obtenir un màster en biofísica per la Universitat Autònoma de Madrid i va iniciar el seu treball doctoral al Centre de Regulació Genòmica de Barcelona. L’any 2016 va defensar a la Universitat Pompeu Fabra la seua tesi doctoral, centrada en la regulació de la transcripció en el bacteri model Mycoplasma pneumoniae, i hi va obtenir un Premi Extraordinari de Doctorat i el Premi al Jove Investigador de la SCB. Actualment investiga respostes transcripcionals dels bacteris de la flora intestinal a la Universitat Catòlica de Lovaina (Lovaina, Bèlgica).
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Flaix de ciència
Dinosaures dels Pirineus, una proposta de divulgació paleontològica al territori Àngel Galobart i Pere Figuerola
El projecte Dinosaures dels Pirineus té com a objectiu divulgar l’extraordinari registre fòssil dels dinosaures que van viure al que actualment és el nostre país fa entre dos-cents cinquanta i seixanta-sis milions d’anys. Es tracta d’una xarxa de museus i centres d’interpretació distribuïts pel territori que expliquen de forma coordinada diversos aspectes d’aquest món ja extingit basant-se en el coneixement científic que han proporcionat més de cent vint anys d’excavacions paleontològiques al Pirineu català. Una bona mostra de l’interès que desperta aquesta temàtica entre el gran públic és el documental L’últim gegant d’Europa, produït per TV3, Batabat i l’Institut Català de Paleontologia Miquel Crusafont, que va merèixer el Premi de Divulgació de la Societat Catalana de Biologia l’any 2018.
luntat de divulgar aquest coneixement, conjuntament amb la curiositat i l’interès que desperta tot allò relacionat amb els dinosaures, ha permès consolidar una xarxa de museus i centres d’interpretació que donen accés al gran públic a aquest coneixement. A través de tallers didàctics i exposicions, però també de llibres, documentals i xerrades, els dinosaures dels Pirineus s’han anat fent lloc a la societat catalana en la darrera dècada, malgrat que la recerca paleontològica va començar fa més d’un segle.
Més de cent vint anys d’excavacions A les conques sedimentàries del nord de Barcelona (Vallcebre, Berguedà) i Lleida (Coll de Nargó, Alt Urgell; Isona i Tremp, Pallars Jussà; Montsec i Àger, la Noguera) s’ubiquen un gran nombre de jaciments paleontològics excepcionals. La història de les troballes es remunta a fa més de cent vint anys (Galobart et al., 2016) i, en alguns casos, la major part del fòssils recuperats des d’inicis del segle xx es troben, actualment, dispersos per diferents museus europeus a causa de la manca de lleis que protegissin aquest patrimoni.
A partir de mitjans del segle passat, diverses expedicions internacionals van fixar els seus objectius en els rics jaciments paleontològics dels Pirineus. Posteriorment, ja en els anys vuitanta, nous equips d’institucions com l’Institut de Paleontologia de Sabadell, la Universitat Autònoma de Madrid o l’Institut d’Estudis Ilerdencs van prendre el relleu dels treballs científics, de manera que els fòssils recuperats es dipositaren en alguns d’aquests centres. Finalment, a partir de 2001, un equip compost per investigadors de l’Institut Català de Paleontologia Miquel Crusafont, la Universitat Autònoma de Barcelona, la Universitat de Barcelona i el Museu de la Conca Dellà endegaren diversos projectes que han servit per ampliar tant el patrimoni paleontològic com els coneixements científics dels jaciments. Tal com estableix la normativa actual, a partir d’aquest moment, el dipòsit patrimonial dels fòssils recau prioritàriament en els museus més propers als jaciments, que són: el Museu de la Conca Dellà a Isona (Pallars Jussà) i el Museu de les Mines de Cercs al Berguedà.
Al vessant sud del Pirineu català es conserva un registre fòssil excepcional que permet conèixer dos moments transcendentals de la vida al planeta. El primer, que podem anomenar l’inici d’un nou món, va tenir lloc al Cretaci inferior (fa uns cent vint-i-cinc milions d’anys, aproximadament) quan van aparèixer gran part de les faunes i flores modernes, que van suposar un canvi dràstic dels ecosistemes terrestres. El segon correspon al final d’una era geològica, el Mesozoic, quan un asteroide va impactar contra la Terra i va acabar amb bona part dels dinosaures, entre molts altres grups d’éssers vius. L’estudi de les evidències de la vida al passat, els fòssils, ens permet reconstruir com van ser aquests mons ja extingits. La recerca paleontològica ha quedat plasmada en nombrosos articles científics que descobreixen la singularitat d’aquelles faunes i flores, augmenten el nombre de noves espècies conegudes de dinosaures i altres vertebrats i caracteritzen els ecosistemes del passat. Però els avenços de la recerca no han quedat circumscrits a l’àmbit acadèmic. La vo-
Imatge 1. Recreació d’un titanosaure, un dels dinosaures sauròpodes habituals en el registre fòssil dels Pirineus (Oscar Sanisidro, Institut Català de Paleontologia Miquel Crusafont).
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 73
73
29/3/21 14:58
Dinosaures dels Pirineus, una proposta de divulgació paleontològica al territori
El projecte Dinosaures dels Pirineus: ciència i divulgació Les excavacions paleontològiques dels anys vuitanta van proporcionar un bon nombre de fòssils i jaciments nous de dinosaures als Pirineus, i les localitats properes van veure en el patrimoni paleontològic una oportunitat d’oferir noves propostes culturals per atraure els visitants més enllà de les que ja existien. Així, l’any 1995 es va inaugurar el Museu de la Conca Dellà amb una temàtica compartida de dinosaures i arqueologia, atès que Isona compta també amb les excepcionals restes romanes de la ciutat d’Aeso. A partir d’aquell moment, altres municipis amb restes fòssils van proposar diversos pro-
jectes per a la museïtzació del seu patrimoni: Areny (a la Ribagorça), Fumanya (al Berguedà) o Coll de Nargó (a l’Alt Urgell) van començar a desenvolupar els seus projectes museogràfics amb més o menys celeritat. Aquesta expansió, però, tenia un risc: que cadascun dels nous equipaments repliqués el model del Museu de la Conca Dellà i oferís els mateixos continguts museogràfics. Així neix el projecte Dinosaures dels Pirineus, amb la voluntat de coordinar la distribució dels continguts científics i de divulgació entre els diferents centres. Cadascun dels elements de la xarxa explicaria una part de la història dels dinosaures i, en el seu conjunt, oferirien una visió global del que va passar en aquesta zona del nostre país fa entre dos-cents cinquanta i seixanta-sis milions d’anys.
Imatge 2. Segon dia d’excavació a Orcau a la tarda (25/8/1955): ACN0738/003, Archivo del Museo Nacional de Ciencias Naturales (CSIC).
74
Revista TSCB 70.indd 74
Els primers contactes per establir la xarxa van tenir lloc l’any 2001 sota el nom Terra de Dinosaures, però no va ser fins l’any 2010 que es van fer efectives les bases de l’actual projecte amb un conveni entre el Departament de Cultura de la Generalitat de Catalunya i l’Institut Català de Paleontologia Miquel Crusafont que tenia per objectiu mancomunar la gestió del Museu de la Conca Dellà i de Dinosfera, a Coll de Nargó, amb el primer com a museu registrat que gestiona, conserva i difon el patrimoni excavat i estudiat pels científics. A partir d’aquell moment s’organitzaren els continguts de divulgació per a cada centre participant de la xarxa. Per una banda, el Museu de la Conca Dellà se centrà en els gran ramats
Imatge 3. Coll del titanosaure excavat a Orcau un cop finalitzat el procés de preparació (Museu de la Conca Dellà).
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Dinosaures dels Pirineus, una proposta de divulgació paleontològica al territori
d’hadrosaures i en els sauròpodes trobats en aquesta conca. Dinosfera aprofità la increïble riquesa d’ous de dinosaure per centrar el seu discurs en la reproducció dels dinosaures. Per la seva banda, el Centre d’Interpretació de Fumanya centrà el seu discurs en els afloraments a l’aire lliure amb petjades i rastres de sauròpodes i també en la relació depredador-presa, ben registrada en el jaciment de Peguera. Amb el temps, a aquests tres centres —que es poden considerar els fundacionals— s’hi han anat afegint altres participants. Un d’ells és el centre de visitants de Tremp, l’Epicentre, que aprofita la privilegiada situació geològica del municipi sobre el límit entre el Cretaci i el Paleocè (també anomenat límit K-Pg), per exposar el que coneixem del món cenozoic, a partir dels jaciments amb mamífers del Pallars Jussà i la Noguera. En aquesta darrera comarca també trobem el Centre de Dinamització de Tartareu, on s’exposen els fòssils d’hadrosaure i els microfòssils recuperats al jaciment de l’Espinau. Finalment, un nou espai a Vilanova de Meià, el Centre d’Interpretació del Montsec, exposa una excepcional mostra dels fòssils trobats a les calcàries litogràfiques del Montsec, aquelles que havien estat excavades fa més de cent vint anys.
El dinosaure d’Orcau, l’últim gegant d’Europa La troballa del coll d’un dinosaure sauròpode a Orcau (Pallars Jussà) és una bona mostra de com una recerca iniciada el segle passat traspassa l’àmbit científic per esdevenir una icona per a la divulgació d’aquest patrimoni paleontològic. La història comença a mitjans dels anys cinquanta, quan el paleontòleg alemany Walter Kühne, durant una campanya d’excavació per localitzar fòssils de mamífers del Mesozoic, topa amb les restes d’un gran gegant. Durant els estius dels anys 1954 i 1955, juntament amb el paleontòleg Emiliano Aguirre i dos treballadors de Suterranya, els senyors Muntaner i Nadal, van extreure diversos ossos de titanosaure que es van enviar a Madrid. Aquesta troballa només se cita en un article (Lapparent i Aguirre, 1956) i es presenta a diversos congressos. A pesar d’això, tant el ossos com el jaciment sembla que van quedar oblidats fins al 1984, quan es reprèn una campanya d’excavació des de l’Institut de Paleontologia de Sabadell, sota la direcció dels doctors Santafé i Casanovas i amb la participació de membres de la Secció de Geopaleontologia de l’Institut d’Estudis Ilerdencs (IEI). Aquesta campanya, registrada en
Bibliografia Galobart, À. [et al.] (2008). «Museos, entidades y centros de investigación de los dinosaurios del Levante peninsular». A: Poza, B. [et al.] (ed.). Dinosaurios del Levante peninsular. Sabadell: Institut Català de Paleontologia Miquel Crusafont, 264-279. — (2016). «Cien años de dinosaurios en Catalunya: la divulgación paleontológica como motor de desarrollo socioeconómico en el Pirineo». Geo-Temas, 16 (1): 775-778. Lapparent, A. F.; Aguirre, E. (1956). «Algunos yacimientos de dinosaurios en el Cretácico superior de la Cuenca de Tremp». Estudios Geológicos, 12 (31-32): 377-382.
I, de nou, un llarg oblit. El següent acte no va tenir lloc fins a l’any 2010, quan els paleontòlegs Bernat Vila i Albert G. Sellés, seguint la pista de l’article de Lapparent i Aguirre contacten amb Antoni Lacasa, de l’IEI, qui mostra la pel·lícula als investigadors, i aquests localitzen de nou el jaciment. Entre els anys 2012 i 2015, es fan noves campanyes d’excavació sota la coordinació de l’Institut Català de Paleontologia Miquel Crusafont, i els paleontòlegs localitzen unes dotze vèrtebres cervicals en posició anatòmica que corresponen al coll d’aquest titanosaure. L’excavació i estudi de noves restes, la recuperació dels ossos de les campanyes anteriors i la recerca d’una hipotètica llibreta de camp són els fils argumentals del documental L’últim gegant d’Europa, produït per TV3, Batabat i l’Institut Català de Paleontologia Miquel Crusafont, que ens apropa a la complexitat d’una recerca paleontològica que ha durat seixanta anys i que va merèixer el Premi de Divulgació de la Societat Catalana de Biologia l’any 2018.
Àngel Galobart és el cap del Grup de Recerca d’Ecosistemes dels Dinosaures de l’Institut Català de Paleontologia Miquel Crusafont, i el director del Museu de la Conca Dellà, a Isona (Pallars Jussà). Ha dirigit nombroses excavacions al Pirineu català i publicat més de trenta-sis articles de recerca en revistes indexades sobre aquest patrimoni paleontològic. També és l’impulsor del projecte Dinosaures dels Pirineus.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 75
una pel·lícula de 8 mm, va descobrir nous fòssils i, degut a unes grans pluges, l’equip els va tornar a cobrir.
Pere Figuerola és el cap del Departament d’Outreach i Comunicació de l’Institut Català de Paleontologia Miquel Crusafont i el responsable de la comunicació del projecte Dinosaures dels Pirineus. És biòleg de formació i des de fa més de quinze anys es dedica a la divulgació científica.
75
29/3/21 14:58
Flaix de ciència
Paleontologia, lapassat ciència passat mirant Paleontologia, la ciència del mirant del al futur al futur : cap a una paleobiologia evolutiva Salvador Moyà-Solà
La reflexió que ve a continuació és en part el resultat d’un fet atzarós: la concessió del Premi de la Societat Catalana de Biologia a la Trajectòria Professional a un geòleg! Certament, el meu camp de recerca, la paleontologia, ocupa una posició molt particular dins del que podríem anomenar ciències naturals, a cavall entre la biologia (els fòssils són restes dels éssers vius del passat) i la geologia (els trobem en el registre geològic). La dialèctica geologia/biologia durant la història de la paleontologia ha estat sempre present i la discussió ha tingut i té implicacions transcendentals per al futur de la disciplina. Crec que la concessió d’aquest premi a un geòleg conté un missatge que tot seguit revelaré. La percepció social de la paleontologia ha passat per fases molt diverses i sense cap mena de
dubte el cinema ens en dona alguns exemples. L’obsessió del doctor David Huxley (Cary Grant), paleontòleg, era trobar la «clavícula intercostal» que li mancava per acabar de reconstruir un esquelet de brontosaure. Susan Vance (Katharine Hepburn), entremaliada i rica hereva amb poca feina, a qui els dinosaures li semblaven d’allò més poc interessant, farà tot el possible perquè no ho aconsegueixi. Amb aquesta trama s’organitza el guió de la pel·lícula Bringing up baby (Howard Hawks, 1938; vegeu la figura 1). Aquesta pel·lícula, amb savis despistats, poc arrelats al món real i obsessionats per omplir museus d’esquelets (vegeu la figura 2), mostra una visió d’aquesta disciplina en el centre de la qual hi ha el fòssil en si, l’objecte com a exemplar de col·lecció (que sol acabar ple de pols). Ben al contrari, Ju-
rassic Park (S. Spielberg, 1993; basada en la novel·la homònima de M. Crichton) ofereix una visió oposada de la paleontologia. Una ciència dinàmica amb connexions amb la biologia i allunyada de la visió de ciència polsosa, purament descriptiva. Aquesta evolució de la percepció de la paleontologia al cinema va en certa manera en paral·lel al que ha estat l’evolució de la disciplina. La paleontologia, com totes les disciplines naturalístiques, va tenir una primera fase de desenvolupament (durant els segles xviii i xix) en la qual classificar, descriure, catalogar eren feines peremptòries per organitzar la informació existent. Però durant el segle xx, moltes disciplines naturalístiques van sortir d’aquest encapsulament tipologista per abra-
Figura 1. Fotograma de la pel·lícula Bringing up baby (Howard Hawks, 1938) amb Katharine Hepburn i Cary Grant. Imatge de domini públic.
Figura 2. Galeria de paleontologia i anatomia comparada del Muséum d’histoire naturelle de París, fundat el 1793. La imatge il·lustra perfectament la visió dominant de la paleontologia (i la zoologia) durant els darrers segles. Imatge de domini públic.
76
Revista TSCB 70.indd 76
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Paleontologia, la ciència del passat mirant al futur
çar noves perspectives basades en avanços conceptuals. Aquest va ser el cas de moltes subdisciplines de la biologia, com l’ecologia, la biologia molecular, la biologia evolutiva en general les quals, integrant nous mètodes i conceptes d’altres camps de la ciència, van aconseguir situar la biologia entre el que podríem anomenar hard science. En canvi, en el cas de la paleontologia aquesta evolució ha vingut molt llastrada per la discussió sobre la seva ubicació dins les ciències biològiques o geològiques, tant conceptualment com pràcticament dins de l’estructura universitària. Aquest fet ha mantingut part de la disciplina encapsulada en la paleontologia descriptiva, com una disciplina accessòria a la geologia. Afortunadament, però, aquest encapsulament no va ser general. Des de principis del segle xx un corrent vinculat a la implicació del registre fòssil per a la comprensió del fenomen de l’evolució, argument ja usat per Darwin (1859), s’ha desmarcat clarament de la paleontologia com a disciplina subsidiària de la geologia. No deixa de ser revelador en aquest context que la clara visió biològica d’alguns il·lustres paleontòlegs, amb formació de geòlegs, hagi arribat a convèncer alguns historiadors de la ciència que eren biòlegs! Aquest és el cas d’un dels paleontòlegs més reconeguts i influents del segle xx i un dels iniciadors d’aquest nou corrent paleobiològic: G. G. Simpson. Va ser un dels artífexs de la teoria sintètica de l’evolució, i va introduir el concepte de la macroevolució, en contraposició a la microevolució (evolució a petita escala de les poblacions locals d’organismes) (Simpson, 1944). Geòleg de formació (doctorat a Yale),
Reif et. al. (2000) s’hi refereixen com a biòleg americà (p. 44). L’aportació de la paleontologia a la construcció de la teoria sintètica de l’evolució, consolidant el seu enorme poder unificador, va ser l’inici d’un corrent que ha anat agafant força amb el temps. En aquest context, prenen molt de sentit els comentaris d’un dels defensors de la visió geològica de la paleontologia (Weller, 1947) afirmant que «paleontology without geology is biology and nothing more». De fet tenia gran part de raó, encara que la seva visió de la paleontologia com a ciència «útil» per a la geologia no li permetia veure la gran transcendència del fet que la paleontologia, amb la seva perspectiva del temps geològic, proporciona una visió única a la qüestió de l’evolució que la biologia té moltes dificultats a oferir. És concretament aquest fet el que encara reforça més, si cap, l’acostament de la paleontologia a la biologia. Justament, el context geològic d’on prové el registre fòssil és el que li dona el potencial per fer aportacions a la biologia. Fruit d’aquest corrent iniciat a començaments del segle xx, tenim un segon moment d’expansió de la paleobiologia, quan Niles Eldredge i Stephen Jay Gould proposen la teoria dels equilibris puntuats, basant-se en la teoria de
l’especiació al·lopàtrica proposada per E. Mayr (1963), i s’inicia el que coneixem com la revolució paleobiològica en el si de la paleontologia. Durant els darrers cinquanta anys s’han anat sumant a aquest corrent múltiples visions noves de la paleontologia, fruit d’una hibridació entre subdisciplines de la biologia (ecologia, evolució insular, paleoproteòmica, evolució de la life-history, paleohistologia, etc.) (vegeu la figura 3), que estan obrint noves finestres d’oportunitat per entendre el fenomen de la vida des d’una perspectiva del temps geològic. De totes maneres, l’eterna discussió de si la paleontologia és una ciència geològica o biològica, en el fons, és una discussió teòrica amb poc sentit. Però, el problema és que té, desafortunadament, repercussions molt importants per al seu desenvolupament i el seu futur. Que la paleontologia tingui uns fonaments biològics molt consistents i s’interconnecti amb l’ecologia, la biologia molecular, la demografia o qualsevol altra disciplina biològica no impedeix que sigui una disciplina accessòria a la geologia. El problema sorgeix quan es tracta de la ubicació formal de la disciplina en el marc universitari. El fet que la paleontologia s’encapsuli a les facultats de geologia moltes vegades ha dificultat el desenvolupament natural
Figura 3. Fèmur de Myotragus balearicus del Pleistocè de l’illa de Mallorca, amb el corresponent tall histològic. S’hi poden observar les línies d’aturada del creixement (LAG, lines of arrested growth) de naturalesa anual, que permeten calcular l’edat dels individus i inferir el seu metabolisme (Köhler i Moyà-Solà, 2009). Inferir la life-history (història de la vida) i determinats aspectes del metabolisme de formes extintes és avui dia possible gràcies a la paleohistologia. Aquesta publicació exemplifica una de les noves tendències en paleontologia, que té com a objectiu la reconstrucció de la història vital dels organismes extints i la seva fisiologia.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 77
77
29/3/21 14:58
Paleontologia, la ciència del passat mirant al futur
d’aquesta disciplina, la seva interconnexió amb disciplines biològiques, i l’ha limitat a ser una disciplina accessòria de la geologia, particularment de l’estratigrafia. Malauradament, a Catalunya la paleontologia ha quedat ancorada a les facultats i als departaments de geologia per qüestions històriques. La geologia cada vegada més deriva cap a la geotècnia, i la paleontologia està patint una greu regressió en l’àmbit universitari, i es troba en un estat de darrers auxilis en alguna de les facultats. És el moment de repensar l’estructura dels estudis universitaris i connectar formalment la paleontologia amb les ciències de la vida. És del tot necessari generar pols de recerca i do-
cència on l’evidència del registre fòssil i l’estudi de les formes vivents es complementin i es retroalimentin per donar una visió holística de la història de la vida, mitjançant una paleobiologia evolutiva que integri formes vivents i fòssils. Actualment ja hi ha una part de la paleontologia que té un grau d’osmosi amb la biologia molt important. La paleontologia empra cada vegada més conceptes i eines biològiques, i la biologia integra amb més freqüència aspectes conceptuals i dades de la paleontologia. Però, a casa nostra falta l’estructura universitària i de recerca que faciliti i estimuli aquesta connexió. L’estructura actual, a més de ser obsoleta, no és més que una muralla que impedeix la tendència natural a la hibridació entre la paleontolo-
Bibliografia Darwin, C. (1859). On the origin of species by means of natural selection, or the preservation of favoured races in the struggle for life. Londres: John Murray. Eldredge, N.; Gould, S. J. (1972). «Punctuated equilibria: An alternative to phyletic gradualism». A: Schopf, Thomas J. M. (ed.). Models in Paleobiology. San Francisco: Cooper and Company, 82-115. Köhler, M.; Moyà-Solà, S. (2009). «Physiological and life history strategies of a fossil large mammal in a resource-limited environment». Proceedings of the National Academy of Sciences, 106 (48): 20354-20358. Mayr, Ernst (1963). Animal species and evolution. Cambridge: Belknap Press of Harvard University Press. Reif, W. E.; Junker, T.; Hoûfel, U. (2000). «The synthetic theory of evolution: General problems and the German contribution to the synthesis». Theory in Biosci., 119: 41-91. Sepkoski, D.; Ruse, M. (ed.) (2009). The paleobiological revolution: Essays on the growth of modern paleontology. Chicago: The University of Chicago Press. Simpson, J. G. (1944). Tempo and mode in evolution. Nova York: Columbia University Press. Weller, J. M. (1947). «Relations of the invertebrate paleontologist to geology». J. of Paleont., 21: 570-575.
78
Revista TSCB 70.indd 78
gia i la biologia. Aquest aïllament està asfixiant la paleontologia. De fet, aquesta ciència té un extens camp per recórrer i tindrà futur, amb els seus propis conceptes i mètodes (molts d’ells heretats de la perspectiva geològica) només si es connecta formalment a la biologia. La paleobiologia evolutiva és el camp natural de trobada i ara s’han de posar els mitjans per ferho factible. L’Institut Català de Paleontologia (ICPMC), seguint en certa manera la filosofia del seu primer fundador (M. Crusafont, que va lluitar per connectar la paleontologia a la biologia mentre era catedràtic de la Universitat de Barcelona, sense aconseguir-ho), va néixer amb aquest objectiu, clarament definit. Seguirem treballant en aquesta direcció.
Salvador Moyà-Solà (Ciutat de Mallorca, 1955). És llicenciat en ciències geològiques per la Universitat de Barcelona (1979) i va obtenir el grau de doctor en ciències geològiques a la Universitat Autònoma de Barcelona (1983). Investigador de l’Institut de Paleontologia M. Crusafont (1985-2005). És professor d’investigació a la Institució Catalana de Recerca i Estudis Avançats (ICREA) (2006-actualitat). Director de l’Institut Català de Paleontologia M. Crusafont (2006-2017). Cap del Grup de Paleoprimatologia i Paleontologia Humana de l’ICPMC (2006-actualitat). El seus camps d’interès són l’estudi dels hominoides (primats del Neogen) i l’estudi de l’evolució en condicions d’insularitat.
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Entrevista a
Stephen R. Carpenter Premi Ramon Margalef d’Ecologia 2018 Bru Papell
«Encara podríem canviar el curs de la crisi ambiental, però ens estem quedant sense temps» Stephen Carpenter ha desenvolupat la major part de la seva carrera a la Universitat de Wisconsin, a Madison (EUA), on va ser director del Centre de Limnologia fins al 2017. Un any després va rebre el Premi Margalef. Una de les seves investigacions amb més repercussió va ser la duta a terme als llacs Peter i Paul, en què ell i el seu equip van evidenciar que la producció primària als llacs no depèn únicament del cicle de nutrients, sinó també de la cadena tròfica. A aquesta fita se n’han sumat d’altres, com l’estudi dels senyals que indiquen un canvi de règim en els ecosistemes i un possible risc de col·lapse.
Com a especialista en limnologia, quina ha estat la influència de Margalef en els seus treballs? En la meva etapa a la universitat, el meu mentor va ser Stuart Fisher, un especialista en ecosistemes de rierols i torrents. Fisher ens va ensenyar les bases conceptuals del pensament en aquest tipus d’ecosistemes, i va incloure treballs de Margalef. Els seus articles van ser inspiradors, i des d’aleshores sempre he intentat emmarcar la meva recerca d’acord amb els conceptes de sistemes complexos, incloent els que Margalef va presentar de manera tan clara als seus treballs. Fa més de trenta anys que investiga els llacs, què el va atraure d’aquests ecosistemes? Tots els ecosistemes tenen límits en l’espai i el temps, i estan sotmesos a una sèrie de processos, com el metabolisme i el cicle de nutrients, que depenen de factors biològics, químics i físics. Els llacs tenen límits clars, i també un conjunt de metodologies ben establertes. Com que a mi m’interessaven més les idees conceptuals, no volia passar gaire temps discutint sobre límits o inventant nous mètodes d’estudi. I els llacs li van semblar una bona opció. Exactament. N’hi ha força en el paisatge, de manera que és possible utilitzar-ne uns pocs per dur a terme experiments que abastin tot l’ecosistema. De les quatre metodologies que tenim per estudiar els ecosistemes —observacions a llarg termini, comparacions, experiments i models—, els experiments són els més difícils de
dur a terme, i els llacs ofereixen avantatges en aquest sentit. Un cop vaig desenvolupar habilitats per estudiar els llacs vaig tirar endavant. Alhora, vaig fer servir tot el temps lliure que tenia per aprendre sobre modelatge i llegir la literatura més general sobre la ciència dels ecosistemes.
«De les metodologies que tenim per estudiar els ecosistemes, els experiments són els més difícils de dur a terme, i els llacs ofereixen avantatges en aquest sentit» Ha dut a terme força recerca als llacs Peter i Paul, que van ser dels primers indrets en què es van dur a terme experiments que abastaven el conjunt dels llacs. Després de doctorar-me el 1979, la meva primera feina va ser a la Universitat de Notre Dame, que posseïa els terrenys on es troben els llacs Peter i Paul. I una de les meves primeres tasques va consistir a dissenyar un programa de recerca en aquella àrea. Els llacs ja eren famosos arran dels treballs d’Arthur Hasler realitzats tres dècades Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 79
Stephen R. Carpenter és professor emèrit a la Universitat de Wisconsin. © Jeff Miller. UW.
abans. Quan em vaig mudar a la Universitat de Wisconsin, vam negociar un nou conveni per poder continuar la recerca als mateixos llacs. I van ser l’escenari del naixement del concepte de cascades tròfiques. I la veritat és que el concepte ha estat molt influent, les cascades tròfiques ara s’utilitzen en diferents tipus d’ecosistemes. Quan vam dur a terme el primer experiment sabíem que el model era rigorós, i les nostres expectatives eren lògiques. No obstant això, esperava estar equivocat, perquè la natura acostuma a ser més complicada del que creiem, de manera que ho veia com una oportunitat per aprendre tot investigant els motius pels quals estava equivocat. Per a la meva sorpresa, algunes de les nostres prediccions eren correctes! I això va validar la idea de les cascades tròfiques i va preparar el terreny per a més experiments. També ha dut a terme recerca en estats alternatius i en la identificació dels primers signes de canvis de règim en els ecosistemes. De fet, les cascades tròfiques són un exemple d’estat alternatiu. Crec que el treball sobre les
79
29/3/21 14:58
Divulgació X
Divulgació T
Entrevista a Stephen R. Carpenter Divulgació ST Divulgació Autor
xarxes tròfiques va preparar la meva ment per als estats alternatius. I un cop sabem que aquests existeixen, és natural preguntar-se sobre les forces que poden promoure el canvi d’un estat a un altre. I aquí també entra en joc la resiliència, a la qual també s’ha dedicat. La resiliència és la tendència a mantenir-se en el mateix estat. Així, un estat resilient persisteix i no es perd fàcilment, tot el contrari que un estat no resilient. Vam convertir aquestes idees en models matemàtics, i un dels resultats va ser la idea que algunes estadístiques d’una sèrie temporal canviarien abans d’un canvi d’estat. Així que vam establir una sèrie d’experiments per testejar aquesta idea, tot esperant novament estar equivocats. Però ens vam tornar a sorprendre en comprovar que els models eren correctes. El canvi ambiental global té a veure amb els canvis de règim en els ecosistemes? Sí. Els ecosistemes són sistemes complexos que sempre tenen fragilitats, i això inclou el sistema global que sosté la nostra civilització. En canviar la manera en què utilitzem els ecosistemes o en provocar-hi estrès ens sorprèn la quantitat de canvis importants o ràpids que s’hi produeixen. I aquests canvis poden tenir conseqüències per a nosaltres, perquè poden afectar el recursos hídrics, l’alimentació, el risc d’incendis, el d’inundacions… I vostè reclama que caldria intervenir-hi abans que es produeixin. La nostra civilització actual podria col·lapsar perquè estem provocant un canvi en el clima cap a un estat més càlid que podria durar molts i molts anys. El risc és molt gran i tenim molt poc temps per actuar. Potser vint o trenta anys com a màxim. Moltes regions de la Terra que actualment estan habitades podrien quedar inundades per l’augment del nivell dels mars o perquè es tornin massa càlides com per poder-hi viure. Per tant, a més de les conseqüències que he esmentat abans, podríem trobar-nos que caldrà buscar noves llars per a milions de persones que actualment viuen en zones costaneres i tropicals.
80
Revista TSCB 70.indd 80
Serem capaços de reaccionar a temps? Hi ha alguns signes de lideratge emergent, sobretot entre els joves. Crec que una cosa que molta gent encara no acaba de comprendre és com de seriós serà el col·lapse, i com n'és, d'urgent, la necessitat d’actuar-hi. Encara podríem canviar el curs d’aquesta crisi, però ens estem quedant sense temps. Atès que molts dels sistemes de la Terra es veuen afectats per aquest canvi sistemàtic, vostè suggereix que caldria promoure la resiliència dels ecosistemes. Podem augmentar la resiliència dels sistemes terrestres reduint les emissions de carboni, transformant la producció d’aliments cap a mètodes de baix impacte ambiental, menjant més plantes i menys carn, i protegint els recursos d’aigua dolça. Aquests canvis haurien d’anar acompanyats d’un consum menor per persona, així com d’un creixement demogràfic menor. En aquesta època de gran desigualtat, podem compartir la riquesa de manera més justa perquè més persones tinguin un consum adequat per a tota la vida, i el consum per capita es torni sostenible. Amb això podríem crear un estat alternatiu de l’existència humana amb possibilitats d’evitar un clima massa càlid de llarga durada. Malgrat que es defineix com un «científic de camp» ha ocupat posicions de responsabilitat que de ben segur van implicar molta feina d’oficina. Com ho va compaginar? Vaig decidir prendre decisions de lideratge per un sentit del deure cap a una gran institució: és el cas de la meva etapa com a director del Centre de Limnologia de la Universitat de Wisconsin, a Madison. També té a veure amb el fet de copresidir el grup d’escenaris per al Millennium Ecosystem Assessment Project. En aquest cas, també tenia curiositat per aprendre com funciona el sistema terrestre i com podria continuar la civilització humana. A través de decisions de la vida ordinària vaig acabar en posicions de lideratge, i vaig aprendre a liderar parant atenció als líders més experimentats, així com a membres de l’equip i d’altres col·laboradors. De tots ells he après la
Carpenter durant el seu discurs de recollida del Premi Margalef 2018. © Rubén Moreno. Generalitat de Catalunya.
gran importància del treball en equip i de la col·laboració. I que els bons equips sorgeixen del respecte mutu, d’escoltar els altres, d’una comunicació clara i del treball compartit.
«La nostra civilització actual podria col·lapsar perquè estem provocant un canvi en el clima cap a un estat més càlid que podria durar molts i molts anys»
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Premi Gemma Rosell i Romero 2019
De tecnologia hàptica a percepció tàctil en cirurgia robòtica Disseny de prova de concepte d’integració de tecnologia tàctil en robot de cirurgia mínimament invasiva Da Vinci Arturo Yscadar Cos, Antonio Alcaraz Asensio i Manel Puig-Vidal
A mesura que la tecnologia ha anat avançant també ho han anat fent les tècniques quirúrgiques. A dia d’avui, es poden dur a terme procediments mínimament invasius a través d’un robot quirúrgic (com seria el robot Da Vinci) que és capaç de controlar l’instrumental, seguint les ordres donades pels cirurgians i cirurgianes. El principal inconvenient d’operar per mitjà d’aquestes tècniques quirúrgiques és la pèrdua total de percepció tàctil.
El principal objectiu d’aquest projecte és dissenyar una prova de concepte d’una integració de tecnologia hàptica (capaç de generar tactilitat a través de lectures de corrent) amb una eina quirúrgica, per dotar el robot Da Vinci de percepció tàctil.
Introducció En la cirurgia robòtica mínimament invasiva l’instrumental no es controla directament, sinó a través d’un sistema robòtic esclau que
imita els moviments que duu a terme el cirurgià o la cirurgiana en una consola de comandament. Un exemple seria el robot quirúrgic Da Vinci dissenyat per la companyia Intuitive Surgical© (Freschi et al., 2013). Una gran mancança d’aquests sistemes és la percepció tàctil, atès que els professionals ja no manipulen l’instrumental amb les seves mans. Aquesta mancança pot causar, per exemple, el trencament no intencionat del fil de sutura quan aquest es tiba. Aquests robots disposen de servomotors, uns dispositius que no només permeten realitzar un moviment, sinó que també poden llegir el corrent consumit per haver realitzat aquesta tasca. Com més resistència es trobi el motor durant el seu gir, més corrent es consumirà. Determinats dispositius hàptics permeten traduir lectures de corrent i parell motor (forces de rotació) en percepció tàctil (Li et al., 2017). Aquests dispositius consten d’un llapis connectat a un seguit de motors. Per tal de generar
Figura 1. Components del prototip final. Fotografia: autor.
El principal objectiu d’aquest projecte és dissenyar una prova de concepte que mostri la viabilitat de la integració entre tecnologia tàctil i el robot Da Vinci i proposar una solució al trencament no intencionat dels filaments de sutura quirúrgica.
Materials i mètodes Primerament es va avaluar el funcionament del robot en prostatectomies radicals robòtiques, cistectomies robòtiques i trasplantaments robòtics de ronyó de donant viu. Seguidament, es va dur a terme un estudi tècnic de la maniobrabilitat i transmissió de moviment de les eines efectores del Da Vinci, que s’anomenen EndoWrist. Els principals components del prototip final són: un ordinador, un dispositiu hàptic (Phantom Omni Haptic), un portaagulles EndoWrist, quatre servomotors Dynamixel AX12, (ROBOTIS, 2019) quatre juntes tòriques, dos braços robòtics Mover4 i Mover6 i estruc-
Figura 2. Mòdul mecànic. Fotografia: autor.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 81
una tactilitat virtual, els motors s’activen per crear una resistència al moviment del llapis.
81
29/3/21 14:58
De tecnologia hàptica a percepció tàctil en cirurgia robòtica
constava d’un sol servomotor Dynamixel AX12 que estirava un filament de sutura quirúrgica unit a un sensor de força (dinamòmetre). Quan el motor començava a rotar, tibava el filament i la força de tracció indicada pel dinamòmetre s’anava registrant progressivament. La ruptura del filament es va donar amb una força igual a 2,5 kg, la qual corresponia a un 26 % de la força de rotació màxima que pot exercir un servomotor Dynamixel AX-12 (vegeu la figura 3).
Figura 3. A l’esquerra, muntatge implementat. A la dreta, gràfica del parell motor fins al trencament del filament. Fotografia: autor.
tures impreses 3D com el marc acoblador i els discs (vegeu la figura 1). El mòdul mecànic es basa en un marc acoblador que uneix servomotors amb l’eina EndoWrist i uns adaptadors tant per a l’eina com per als servomotors connectats amb unes juntes tòriques (vegeu la figura 2). Quant als programes controladors, s’ha dissenyat un integrador amb llenguatge LabVIEW. Aquest es basa en una comunicació bidireccional entre els servomotors i el dispositiu hàptic. L’hàptic envia els canvis d’angles d’orientació de l’eina, mentre que els servomotors envien el corrent consumit a l’hàptic per saber així quina resistència virtual crear en el moviment del llapis controlat per l’usuari o usuària.
comprovar que la maniobrabilitat i el moviment de l’eina EndoWrist, subjectant l’agulla, eren els mateixos que el del comandament del dispositiu hàptic. Seguidament, es va dur a terme una validació experimental de la retroalimentació de força (en anglès force feedback). Es va mesurar la resistència a la força de tracció que experimentava un filament així com també la força de rotació exercida pel servomotor. L’experiment
Per altra banda, es va tornar a mesurar la força exercida, però aquest cop no d’un sol servomotor, sinó de tot el prototip final, subjectant l’agulla de sutura quirúrgica amb l’extrem lliure del filament unit al dinamòmetre. El prototip final era capaç de detectar variacions d’un 10 % (o, equivalentment, d’1,2 kg) de força de rotació (vegeu la figura 4). Consegüentment, el dispositiu detectava variacions de força i parell motor força abans de la ruptura del filament. Per tant, el prototip és capaç de proveir percepció tàctil durant la realització de simulacions de sutures quirúrgiques.
Discussió de resultats El prototip sempre s’ha de considerar com un pas inicial en una possible futura investigació
Finalment, es van dissenyar tècniques d’avaluació del funcionament del prototip i la seva sensitivitat a canvis de força intentant reproduir escenaris de sutura.
Resultats Primerament es van avaluar els tres moviments d’orientació de l’eina: guerxament, capcineig i guinyada (més habitualment coneguts en anglès com roll, pitch i yaw, respectivament). D’aquesta manera es va aconseguir
82
Revista TSCB 70.indd 82
Figura 4. Registres del parells motors fent servir el prototip final.
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
De tecnologia hàptica a percepció tàctil en cirurgia robòtica
ment alternatiu. Gràcies a fer servir un model més petit de servomotor, s’ha pogut dissenyar unes estructures columnars que directament connecten els motors amb les parts mòbils de l’eina EndoWrist (vegeu la figura 5); d’aquesta manera ja no és necessari fer servir les juntes tòriques i, per tant, s’elimina l’efecte lliscant entre les juntes i els discs 3D. A més a més, s’ha aconseguit facilitar l’acoblament entre els motors i l’eina quirúrgica.
Conclusió Figura 5. Disseny alternatiu amb els nous servomotors alineats verticalment. Fotografia: autor.
més extensa. Per tant, tot i que el dispositiu satisfà tots els objectius inicialment plantejats, presenta algunes deficiències tant mecàniques com informàtiques. Per una banda, hi ha una limitació mecànica en el sistema de transmissió de moviment entre els servomotors i l’eina quirúrgica EndoWrist. L’ús de juntes tòriques i discs 3D suposa un lliscament no desitjat entre ells. Quan se sotmet l’eina quirúrgica a resistències elevades, els servomotors segueixen rotant però no es transmet el moviment a l’instrument. A més a més, atès que s’han fet servir cargols com a mètode de fixació entre els discs 3D i
l’eina EndoWrist, el sistema ja no és fàcilment desmuntable i per tant no es pot canviar ràpidament d’instrument. Tot això sense considerar l’estrès mecànic que suposa el fet de cargolar les peces directament a l’eina. Per altra banda, estudiant els programes controladors del prototip, seria de gran interès generar un sistema capaç de traduir les forces de rotació dels quatre servomotors en components X, Y i Z del parell motor que requereix el dispositiu hàptic. Finalment, es van resoldre les deficiències mecàniques, pel que fa a la transmissió de moviment, dissenyant un nou sistema d’acobla-
Bibliografia Freschi, C. [et al.] (2013). «Technical review of the da Vinci surgical telemanipulator». The International Journal of Medical Robotics and Computer Assisted Surgery, 9 (4): 396-406. Li, L. [et al.] (2017). «Development of an inexpensive tri-axial force sensor for minimally invasive surgery». A: Proceedings of (IROS) IEE/RSJ International Conference on Intelligent Robots and Systems. Vancouver (Canadà): IEEE, 906-913. Robotis (2019). AX-12/AX-12+/AX-12. <http://support.robotis.com/en/product/ actuator/dynamixel/ax_series/dxl_ax_actuator.htm> [Consulta: 6 abril 2019].
Malgrat tot, s’han detectat algunes deficiències en el prototip final. Aquest projecte s’ha d’entendre com un pas inicial en una possible futura investigació més extensa. Finalment, s’està intentant donar solució a un problema actual en les cirurgies mínimament invasives assistides per tecnologia robòtica. Una solució que suposaria una millora no tan sols per al pacient sinó també per al personal sanitari.
Arturo Miguel Yscadar Cos (Caracas, Veneçuela, 1997) és llicenciat en enginyeria biomèdica per la Universitat de Barcelona (2019). Ha treballat com a enginyer de projecte, ajudant en la coordinació de la instal·lació d’equipament mèdic en quiròfans, a l’Hospital Maternoinfantil Sant Joan de Déu de Barcelona i a l’Hospital Universitari de Bellvitge. El seu camp d’interès són les tècniques i tecnologies quirúrgiques, la robòtica mèdica i les eines de monitorització i tractament de pacients en estat crític.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 83
S’ha pogut dissenyar satisfactòriament una prova de concepte d’una integració de tecnologia hàptica i cirurgia robòtica. El prototip és capaç de controlar adequadament una eina EndoWrist mentre proveeix l’usuari o usuària de percepció tàctil en tot moment, de manera que s’assoleixen tots els objectius plantejats a l’inici del projecte.
83
29/3/21 14:58
Centre
Marimurtra: dea Linné Goethe a Linné passant Marimurtra: de Goethe passant per Epicur per Epicur Josep M. Camarasa
Els primers mesos de 1918 corrien per Blanes rumors ben estranys. Un alemany havia comprat, a tocar de Sa Forcanera i del camí de la cala Sant Francesc, unes terres que anys enrere havien estat vinyes però que la fil·loxera havia deixat ermes un quart de segle abans. Allò era notícia. Hi havia qui deia que volia replantar-les de vinya per intervenir en el negoci xampanyer; hi havia qui deia que senzillament volia fers’hi una bona casa amb jardí amb vistes al mar; però la majoria estaven convençuts que l’alemany el que volia era un espai discret per poder avituallar els submarins del seu país que de nit podien acostar-se a Sa Forcanera.
Poc es pensaven els blanencs de 1918 que un segle més tard aquells erms i vinyes de mal pèl que havia comprat l’alemany haurien esdevingut un jardí botànic esplèndid, que rep anualment més de cent mil visitants. I és que el propòsit de Carl Faust, aquell alemany, era molt més ambiciós del que sospitaven. El seu ideal, segons confessava al botànic català Josep Cuatrecasas, en una carta tramesa des de Mònaco a començaments de 1938, era crear «un “Jardín Epicúreo de los Biólogos” en donde puedan sabios y estudiantes, lejos de los ruidos de la gran urbe, desprendidos de la vida cotidiana, en medio de un jardín interesante, de un clima ideal y de un paisaje helénico, dedicarse por completo a la creación de valores ideales y a la busca de la verdad única». I és que Carl Faust —don Carlos, com es feia dir i com el coneixien els blanencs—, gran admirador de l’obra de Goethe, s’emmirallava en un dels personatges de l’escriptor: Wilhelm Meister. Com ell, venia d’una família burgesa poc complaent amb les dèries del jove, en el seu cas les ciències de la natura, no el teatre com en el cas de Wilhelm Meister. Com aquest, havia sentit la fascinació del sud però, en comptes de la Itàlia que escalfava el cor de Mignon a l’obra goethiana, havia triat Catalu-
84
Revista TSCB 70.indd 84
nya, i Blanes en concret, com a destí del seu peregrinar. I, volent prendre venjança del destí advers de la seva joventut, a causa de les imposicions paternes, va decidir donar un gir decisiu a la seva vida aprofitant els diners i l’experiència que havia guanyat en la seva etapa d’home de negocis, que donà per closa en fer els cinquanta anys. El resultat ha estat, al cap d’un segle, aquesta meravella de jardí botànic al qual el seu fundador va posar el nom de Marimurtra perquè en ell es confronten l’espectacle marí dels penya-segats que van de Sa Forcanera a cala Bona, la també anomenada cala Sant Francesc, i la vegetació mediterrània i d’altres indrets del món simbolitzada per la murtra (Myrtus communis), la planta d’Afrodita, símbol d’amor i de bellesa. Marimurtra és avui un jardí que rep anualment més de cent mil visitants i alhora és una institució científica dedicada a l’estudi de la biodiversitat i de la biologia de la conservació d’espècies amenaçades, així com a la divulgació del coneixement sobre el món vegetal. S’hi poden observar més de quatre mil espècies de plantes, tant mediterrànies com exòtiques, en un marc que fa d’aquest jardí un dels més bells de la Mediterrània. La part visitable del jardí ocupa unes quatre hectàrees repartides en tres espais que poden considerar-se tres jardins diferents. En franquejar l’entrada, en la qual ens dona la benvinguda un conjunt d’edificacions de gust noucentista, obra de l’arquitecte Josep Goday, hom accedeix al primer jardí. És el primer, no tant per la circumstància de trobar-se al començament del recorregut, com per haver estat el primer en ser arranjat per Carl Faust i els seus jardiners ja des de finals dels anys vint del segle passat. És el jardí subtropical, en el qual creixen cactus i plantes suculentes de les regions subtropicals d’Amèrica i Àfrica com les diferents espècies d’atzavares (Agave sp.), de figueres de moro o nopals (Opuntia sp.), d’àloes (Aloe sp.) o les eufòrbies cactiformes africanes (Euphorbia sp.). També s’hi troben, a la pèrgola que ocupa la part final d’aquest jardí, plantes que creixen en condicions no tan àrides a les mateixes latituds. Al començament
del trajecte, a l’anomenada costa de Sventenius en honor d’aquest botànic suec que va ser jardiner a Marimurtra els anys trenta del segle passat, es troba una rocalla on es presenta la flora macaronèsica (illes Canàries i Madeira), amb diverses espècies del gènere Aeonium, conegudes a les Canàries amb els noms de góngaro o bejeque, i un exemplar singular de Picconia excelsa, el palo blanco de les Canàries. A la pèrgola, enmig d’una vegetació exuberant, en la qual destaquen dues aristolòquies enfiladisses de flors vistoses i enormes —més de trenta centímetres— (Aristolochia gigantea i A. grandiflora), un bust de bronze situat al peu d’una magnòlia (Magnolia grandiflora) homenatja el fundador de Marimurtra. El segon jardí és anomenat també jardí temperat, però hi conviuen espècies tant de climes temperats com subtropicals. Hi ha una remarcable col·lecció de palmeres que ha sofert algunes baixes a causa de la infestació del morrut roig de les palmeres (Rhynchophorus ferrugineus), en el combat contra la qual Marimurtra ha introduït amb èxit tècniques capdavanteres. Al costat de les palmeres hi ha també diverses araucàries, entre elles una Araucaria bidwillii, el bunya pine del nord-est d’Austràlia, monumental, de prop de vint metres d’alt. Al segon jardí es troba també l’horta ecològica de Marimurtra, en la qual es cultiven varietats autòctones d’hortalisses sense ús d’adobs químics ni pesticides sintètics. I també s’hi troba un dels atractius recentment incorporats, una important col·lecció de cicadals, fruit d’una donació, posteriorment enriquida amb aportacions d’alguns dels patrons i intercanvis amb altres jardins. Pel camí de Josep Cuatrecasas, entre el palmerar i el parterre de bambús (Phyl lostachys viridiglaucescens) originaris de l’est de la Xina, comença la baixada cap al tercer jardí, al qual s’accedeix per un túnel que passa sota el camí de Blanes a la cala Sant Francesc o cala Bona. El tercer jardí, o jardí mediterrani, acull plantes de totes les regions del món de clima mediterrani (centre de Xile, Califòrnia, sud-oest d’Austràlia i diferents punts d’Austràlia meridional, província del Cap, a Sudàfrica, i, per descomp-
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Marimurtra: de Goethe a Linné passant per Epicur
tat, les regions que envolten la mar Mediterrània). Aquí les espècies autòctones troben el seu lloc natural, sovint representades per exemplars remarcables, com ara un exemplar de margalló (Chamaerops humilis) de cinc troncs, un dels quals fa prop de sis metres, o les grans lleterasses (Euphorbia dendroides), no gaire lluny d’aquest. S’hi troben també altres arbres i arbusts autòctons (pins blancs, suros, arboços, murtres) potser no tan espectaculars, però que conformen un conjunt ben representatiu de les nostres àrees costaneres. I també s’hi troba alguna raresa ben mediterrània, com un exemplar de roure dels Balcans (Quercus macrolepis), espècie pròpia de la Mediterrània oriental rarament cultivada a l’occident mediterrani. Destaquen, a l’àrea dedicada a la vegetació de la Mallee australiana dos esplèndids exemplars de Callitris preissii, un xiprer endèmic del sudoest d’Austràlia i també s’hi pot veure el lliri gegant d’Austràlia (Doryanthes palmeri), espècie molt rara, actualment en perill d’extinció a la seva àrea natural. A l’àrea dedicada al chaparral californià s’hi pot veure un exemplar esplèndid de xiprer de Lambert (Cupressus macrocarpa) i tres exemplars no menys esplèndids de palmera blava (Brahea armata).
un dels arquitectes noucentistes més reconeguts, que en aquell moment es trobava al cim de la seva carrera, el projecte del conjunt de casa, jardí i templet que havia d’ocupar els terrenys adquirits. El 31 de desembre d’aquell any l’arquitecte lliurava el projecte, i entre 1924 i 1929 es van construir les edificacions de l’entrada i va començar l’agençament del jardí.
Però, a més de l’interès pròpiament botànic, el tercer jardí acull també un conjunt d’espais d’una bellesa incomparable. La baixada des de la plaça de Goethe fins al templet de Linné per l’escala d’Epicur, amb els penya-segats de Sa Forcanera que s’entreveuen al fons, és com una síntesi d’aquell ideal de Faust de crear un jardí interessant, en un espai de clima ideal i paisatge «hel·lènic», on savis consagrats i joves estudiants es poguessin dedicar a la creació i la transmissió de coneixement.
En canvi, el primer jardiner que va tenir al seu càrrec el condicionament del jardí com a tal, l’arranjament dels camins i la preparació del terreny per acollir les plantacions va ser el jove suís Zenon Schreiber (1904-1989) qui, de 1927 a 1931, va posar els fonaments del que seria en el futur Marimurtra i, en particular, va construir la rocalla que avui duu el seu nom. Anys més tard emigrà als Estats Units, on va fer una carrera brillant com a arquitecte paisatgista i treballà per a algunes de les grans fortunes del país, com els Rockefeller, o per a personalitats com el president Dwight D. Eisenhower.
Un ideal per al qual no cal dir que Carl Faust va posar tots els mitjans al seu abast. A aquella primera adquisició de terrenys de 1918, que tantes suspicàcies va aixecar entre els blanencs, va anar afegint noves compres de terrenys adjacents fins a completar el 1921 la pràctica totalitat dels terrenys que avui conformen el jardí. Però ja abans, el 1919, en arrodonir la primera etapa de les seves adquisicions, Faust havia encarregat a l’arquitecte Josep Goday,
Pel que fa a la tria i la distribució de les espècies vegetals que havien de poblar el jardí, Faust es va posar en mans dels millors botànics i jardiners que va conèixer. El primer de tots, que reunia les dues condicions, va ser el seu compatriota Alwin Berger (1871-1931), responsable de botànica del Naturkundemuseum Stuttgart i un dels millors especialistes mundials en plantes crasses del seu temps, però que abans havia estat durant disset anys conservador del jardí botànic de La Mortola, a Ventimiglia, un del models (fins i tot en el nom) que Faust tenia presents per al seu jardí. Però ben aviat el seu ventall de botànics assessors s’amplià amb Ludwig Diels (1874-1945), Carlos Pau (18571937), Josep Cuatrecasas (1903-1996) i, sobretot, Pius Font i Quer (1888-1964) a qui Faust va arribar a qualificar de «director espiritual».
Però el jardiner que va deixar una empremta més gran en el definitiu disseny de Marimurtra va ser l’alemany Wilhelm (Willy) Narberhaus (1904-1981), primer entre 1930 i 1934 i després els anys quaranta i cinquanta del segle passat. Així com Schreiber s’havia centrat principalment en la rocalla, a donar cos al primer dels tres jardins i a situar-hi adequadament les priTreballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 85
meres col·leccions de cactus i suculentes, Narberhaus es va centrar en el disseny i la plantació dels altres dos espais de Marimurtra, tasca que no completà fins després de la Guerra Civil de 1936-1939 i de la Segona Guerra Mundial, que Narberhaus, fugit de Catalunya el 1936, va passar en bona part a Alemanya. El successor de Narberhaus com a jardiner va ser el suec Eric Ragnar Svensson (1910-1973), més conegut com a Sventenius a partir de la seva estada a Catalunya, qui, entre 1936 i 1940, pràcticament no va poder fer altra cosa (i ja va ser molt) que assegurar la continuïtat del jardí a través de la maltempsada de la guerra. Justament va ser en els primers mesos de l’estada de Svensson a Marimurtra, a començaments de 1936, que Faust i Goday s’havien posat d’acord en el que seria el darrer projecte signat per l’arquitecte (mort el maig d’aquell any, als cinquanta-quatre anys): el templet de Linné, la plaça de Goethe, les escales d’Epicur i la planificació general del tercer jardí que, no obstant això, no es duria a terme totalment fins després de la mort de Faust. Només el templet, les columnes del qual ja s’alçaven quan Faust marxava de vacances a començaments de juliol de 1936, s’acabaria els anys quaranta, encara en vida seva. Però els primers anys quaranta varen ser especialment difícils per a Marimurtra. Les onades de fred del gener de 1940 i el gener de 1941 i les prolongades sequeres (la pertinaz sequía de la propaganda franquista per justificar les penúries de la postguerra) dels anys següents causaren molts estralls entre les plantes del jardí, sobretot els cactus i les plantes crasses, estralls que es repetiren amb les onades de fred del desembre de 1946 i el gener de 1947. Per sort l’hivern següent va ser molt més benigne i la primavera de 1948 va ser molt plujosa, amb la qual cosa el jardí es va poder recuperar en part d’aquelles pèrdues. Faust no va poder veure realitzat en vida el seu ideal, però per assegurar el futur de Marimurtra va crear, el febrer de 1951, poc més d’un any abans de la seva mort, una fundació, que porta el seu nom, destinada a mantenir i millorar en el
85
29/3/21 14:58
Divulgació X
Divulgació T
Marimurtra: de Goethe a Linné passant per Epicur Divulgació ST Divulgació Autor
possible Marimurtra com a espai de ciència, art, cultura i lleure per a tots els seus visitants. Després de la mort de Faust, sota la gestió del primer patronat de la nounada fundació, Marimurtra va romandre tancat als visitants els primers anys i sense una direcció científica clara si bé, per sort, la bona sintonia dels patrons amb Willy Narberhaus va permetre que aquest completés les obres pendents del tercer jardí, en particular el conjunt de la plaça de Goethe, l’escala d’Epicur i les pèrgoles que flanquegen el templet de Linné. L’onada de fred del febrer de 1956 marca un punt d’inflexió en la gestió del jardí. D’una ban-
da, els freds terribles d’aquell febrer mataren moltes plantes i això obligà a comprar nous exemplars i llavors i a reordenar alguns dels espais més malmesos. De l’ altra, en plantejar-se la necessitat d’obrir el jardí a un públic, fruit de la creixent allau turística que començava a envair la Costa Brava, sense un interès específic per la botànica s’accelerà la construcció dels elements paisatgístics encara avui més apreciats pels visitants, el ja esmentat conjunt de la plaça de Goethe, amb la primera estrofa de la Mignon de Goethe en alemany, català i castellà a les parets ceràmiques que la presideixen, l’escala d’Epicur (acabada el 1959) i el templet de Linné amb les pèrgoles que l’emmarquen. Ja el 1959 Marimurtra rebé vint-i-cinc mil visitants,
que es convertirien en vuitanta mil el 1963 i que ben aviat superaren els cent mil anuals, fins a arribar, el 2001, a frec dels cent cinquanta mil. Des de llavors s’ha mantingut entre els cent mil i els cent vint mil, tret dels anys entre 2009 i 2015 que va caure per sota dels cent mil. Aquest important flux de visitants és la base del sosteniment del jardí i de les activitats científiques i divulgatives que s’hi duen a terme. De la conservació del banc de germoplasma a les visites guiades d’escolars o d’adults, de la conservació d’espècies amenaçades de la nostra flora a la reintroducció en el seu hàbitat natural, quan això és possible, d’espècies extingides en determinats espais.
Bibliografia Camarasa, J. M. (2006). «Les llargues vacances del 36 de Carl Faust». Blanda: Publicació de l’Arxiu Municipal de Blanes, 9: 56-71. — (2012). «Carl Faust, mecenes alemany». Revista de Girona, 275: 42-44. — (2013). «Sventenius en Cataluña (1934-1943)». Botánica Macaronésica, 28: 9-20. Camarasa, J. M.; Casado, S. (2005). «Ya no volveremos a España: testimonio del inicio del exilio de Josep Cuatrecasas». Boletín de la Institución Libre de Enseñanza, 58: 81-102. Camarasa, J. M.; Silleras, M. E. (2013). «El llegat de Carl Faust: el discret mecenatge de les ciències de la natura a casa nostra». Mètode, 76: 27-30. González Sales, E.; Nubiola Armangué, J. (2006). «Marimurtra». La Punxa, 42: 11-24. Hahn, E. (1932). «Ein neues La Mortola i Spanien». Die Gartenwelt. Illustrierte Wochenschrift für den gesamten Gartenbau, 26: 383-384. Maaz, H. (1935). «Ein katalanisches Gartenparadise». Gartenschönheit (novembre): 250-252. Puigventós López, E. (2019). Marimurtra, la república dels biòlegs: Biografia de Carl Faust. Blanes: Fundació Privada Carl Faust; Girona: Documenta Universitaria. Sagrera, M. A. (2009). «Guillermo Narberhaus Flamm i Blanes». Blanda: Publicació de l’Arxiu Municipal de Blanes, 12: 62-75.
86
Revista TSCB 70.indd 86
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Premi Nobel de Fisiologia o Medicina 2018
El Premi Nobel 2018 guardona la immunoteràpia del càncer Jordi Barquinero
El sistema immunitari humà està format per un complex entramat de tipus cel·lulars i molècules especialitzades que interactuen i fan possible les seves múltiples funcions, moltes d’elles crítiques per al manteniment de l’homeòstasi i de la nostra pròpia integritat. Per tal d’evitar respostes immunitàries desproporcionades o cronificades en el temps, que serien altament lesives, l’evolució ens ha dotat d’una sèrie de mecanismes de control. El Premi Nobel de Fisiologia o Medicina 2018 ha estat atorgat als descobridors de dos d’aquests mecanismes, que han propiciat una nova manera de tractar el càncer que ja ha millorat el pronòstic de milers de pacients.
Tallar, cremar, enverinar. La cirurgia, la radioteràpia i la quimioteràpia han estat els tres grans pilars, sols o en combinació, en els quals tradicionalment la medicina ha basat el tractament del càncer. Més recentment, el coneixement de les bases moleculars dels tumors ha permès el desenvolupament de teràpies moleculars dirigides a aprofitar les alteracions genètiques o metabòliques, més o menys específiques, que caracteritzen les cèl· lules canceroses i que d’alguna manera actuen com els tendons d’Aquil·les del creixement tumoral. Quant a la idea d’utilitzar el sistema immunitari per lluitar contra els tumors, tot i que fa un segle ja va ser propugnada pel metge alemany Paul Ehrlich, i malgrat observacions ocasionals de remissions espontànies de tumors, de vegades associades a infeccions, ha estat necessari esperar que es descobrissin els mecanismes moleculars implicats en la regulació de la resposta immunitària adaptativa, especialment de les cèl·lules T, per aconseguir amb medicaments que aquestes cèl·lules puguin lluitar eficaçment contra tumors establerts. Estudis recents han confirmat que en alguns pacients amb tumors molt agressius com el melanoma, la immunoteràpia combinada amb les anomenades teràpies moleculars
poden beneficiar una gran majoria de casos (Ribas et al., Tang et al.). Una qüestió que va intrigar moltes generacions d’estudiosos era per què el sistema immunitari no rebutjava les cèl·lules tumorals. Una resposta òbvia era que els sistemes immunitaris han evolucionat per controlar la patogenicitat dels microorganismes (patògens), però no necessàriament per lluitar contra els tumors. A més, els càncers deriven de cèl·lules normals, i per tant les cèl·lules immunitàries podrien no veure gaires diferències entre unes i altres des del punt de vista antigènic, de manera que molts tumors podrien ser invisibles o molt poc visibles per als sistemes d’immunovigilància. Avui se sap que les cèl·lules canceroses acumulen mutacions en el seu DNA, i que aquestes mutacions provoquen canvis en les proteïnes codificades, que les tornarien antigèniques, podrien ser reconegudes com a estranyes i aquests nous antígens es convertirien en dianes d’una eventual resposta immunitària, fet que podria reduir el creixement tumoral. Se sap que alguns tumors com ara el melanoma o el càncer de pulmó són més immunògens que altres, perquè acumularien més mutacions. Però per treure profit de tot això calia encara conèixer en detall els mecanismes que eviten que el sistema immunitari s’activi d’una forma eficaç enfront dels tumors, almenys en una gran majoria del pacients. També s’havia trobat que la majoria dels càncers creixen d’una manera molt dinàmica, seleccionen contínuament cèl·lules adaptades a condicions adverses (com serien la presència de quimioteràpia o del sistema immunitari activat), i segresten en el seu benefici alguns mecanismes cel·lulars com per exemple els encarregats de la mateixa regulació de la resposta immunitària. Dos d’aquests mecanismes de control són les vies del CTLA4 i la PD-1, que es podrien comparar, respectivament, als frens de mà i de peu d’un cotxe. Els principals descobridors de la importància d’aquestes vies moleculars en la regulació de la resposta immunitària són els investigadors James P. (Jim) Allison i Tasuku Honjo. Per tal d’iniciar una resposta cel·lular davant un antigen no és suficient que aquest sigui Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 87
presentat al receptor de les cèl·lules T dins de molècules del sistema major d’histocompatibilitat (MHC, o HLA en el cas d’humans) presents en les cèl·lules presentadores d’antigen (o APC); també és necessari que, com a mínim, s’activi una segona molècula coestimuladora, un sistema de doble clau que funciona com a mecanisme de seguretat, com quan volem esborrar un missatge de correu electrònic i el sistema ens demana si estem segurs que el volem esborrar. Un d’aquests senyals coestimuladors més importants és la molècula CD28, un correceptor de les cèl·lules T que havia estat descobert per Paul Martin i John Hansen el 1986 (Martin et al.). La CD28 s’activa quan s’uneix a algun dels seus lligands activadors CD80 o CD86, també presents en la superfície de les APC. Aquesta activació, però, ha d’estar finament controlada per tal d’evitar que sigui desproporcionada o massa perllongada. La molècula CTLA4 ja havia estat prèviament descoberta (Brunet et al.) i caracteritzada pel grup de Peter Lindsley el 1991 com un altre lligand de CD28, però inicialment havia estat descrita com una molècula estimuladora de CD28 i, de fet, ja estava sent investigada com una diana terapèutica per a malalties autoimmunitàries. Jim Allison va ser el primer que la va identificar com un inhibidor de CD28, i va predir i finalment demostrar que la seva inhibició amb un anticòs específic que ell mateix havia generat eliminava aquest bloqueig de l’activació dels limfòcits T i afavoria la immunitat en diferents models animals de càncer, la qual cosa es traduïa en un claríssim efecte terapèutic (Leach et al.). Així doncs, CD28 seria el pedal de l’accelerador i CTLA-4 el fre de mà, que tindria un potent efecte dominant: si està present s’uneix amb molta més afinitat a CD28 que els seus competidors CD80 i CD86, però en lloc d’activar-lo, com s’havia pensat prèviament, el manté bloquejat de manera que les cèl·lules T romanen inactives (anèrgiques). En les cèl·lules T efectores, CTLA4 s’expressaria només en les fases inicials de la seva activació, moment crític on és important que aquesta sigui autolimitada, mentre que en el cas de les cèl· lules T reguladores l’expressió és permanent (constitutiva), ja que aquestes cèl·lules són les
87
29/3/21 14:58
El Premi Nobel 2018 guardona la immunoteràpia del càncer
encarregades de mantenir en tot moment l’autoimmunitat sota control, entre altres funcions. Molt pocs anys abans, a començament dels anys noranta, a la Universitat de Kyoto, el doctor Tasuku Honjo havia descobert la molècula PD-1. Aquesta proteïna estava present a la superfície de les cèl·lules T, i tot i que inicialment la va descriure com implicada en la mort cel·lular programada, més tard va comprovar en una sèrie molt elegant d’experiments que el mecanisme pel qual debilitava la resposta immunitària no era la inducció de la mort cel·lular en els limfòcits T sinó la senescència, l’envelliment o l’esgotament (Okazaki i Honjo, 2007). La PD-1 no s’uneix a CD28, s’activa quan s’uneix a una altra molècula anomenada PDL1 (lligand de PD-1), que està present en la superfície de les APC però també en la de moltes cèl·lules canceroses, que han «après» a utilitzar aquesta via per passar desapercebudes per al sistema immunitari. Utilitzant ratolins en els quals s’havia inactivat el gen PD-1 (el doctor Honjo ha basat els seus estudis més importants en models d’inactivació genètica, alhora que reconeix les limitacions dels experiments basats en l’ús d’anticossos), va comprovar que aquests ratolins desenvolupaven autoimmunitat, i per tant va deduir correctament que PD-1 era un fre natural per a la resposta immunitària (Nishimura et al.). De fet, el seu funcionament s’assemblaria més al d’un fre de peu del cotxe ja que, a diferència del CTLA4, no evitaria l’activació inicial, sinó que modularia la seva acció una vegada les cèl·lules T ja estan activades. El seu grup també va ser el primer que va desenvolupar anticossos que bloquejaven PD-1 i en va descriure l’efecte immunoestimulador i antitumoral. Des d’aquest punt de vista, Tasuku Honjo, que anteriorment ja havia fet contribucions seminals a la immunologia (com elucidar el mecanisme de la commutació de classe d’immunoglobulina), es pot considerar el principal pare intel·lectual de la PD-1, atès que el seu equip va descobrir la molècula, la seva funció i en va desenvolupar l’aplicació en l’àmbit del tractament del càncer, a diferència de la contribució de Jim Allison, que no va descobrir la molècula CTLA4, tot i que va ser el pri-
88
Revista TSCB 70.indd 88
mer a adonar-se de la seva funció, va desenvolupar un anticòs antagonista i en va demostrar l’efecte antitumoral. En les seves conferències, el doctor Honjo sovint remarca la importància de veure amb ulls nous allò que és insòlit, no acceptar cegament el que està escrit als llibres de text, interrogar-se sempre i comprovar les coses per un mateix. Tant la molècula CTLA4 com la PD-1 actuen com punts de control (o checkpoints), i d’aquí ve el nom genèric d’inhibidors de punts de control que rep aquesta forma d’immunoteràpia basada en anticossos o fàrmacs blocadors d’aquests senyals inhibidors. Tot i que aquestes teràpies, soles o combinades amb altres tractaments, funcionen en un nombre cada vegada més alt de tipus de tumors i en un percentatge més alt de pacients (en alguns arriba a funcionar en el 70 % dels casos), no són una panacea. La inhibició d’aquests frens de la resposta immunitària no és específica de la resposta antitumoral, de forma que sovint aquesta inespecificitat es cobra un preu en forma d’autoimmunitat, com a principal efecte indesitjable. L’any 2011 l’agència americana responsable dels medicaments i aliments (FDA) va aprovar la comercialització del primer inhibidor de CTLA-4, l’ipilimumab, al qual van seguir els primers inhibidors de PD1 (com el nivolumab) el 2015, i del seu lligand PD-L1 (com l’atezolizumab), el 2016. El conjunt d’aquests medicaments biològics es coneix amb el nom genèric d’inhibidors dels punts de control, i molts d’altres estan ara mateix en diferents fases de desenvolupament preclínic o clínic. A més d’aquesta nova i potentíssima estratègia, altres desenvolupaments en l’àmbit de les denominades teràpies avançades, com ara les cèl·lules CAR-T o els limfòcits infiltrants de tumors (TIL), han consolidat la immunoteràpia com la quarta pota del tractament antitumoral. Molts estudiosos creuen que la majoria dels càncers que es detecten en fases relativament avançades només podran ser curats atacant-los de forma sinèrgica des de diferents fronts, la qual cosa implica necessàriament combinar diferents estratègies terapèutiques.
En aquest sentit, la immunoteràpia és especialment prometedora, ja que a més del seu efecte intrínsec també ha demostrat la seva capacitat per sinergitzar amb altres formes de tractament ja existents. De fet, la majoria dels assaigs clínics actuals en què s’utilitza la immunoteràpia no estan analitzant nous productes, sinó formes diferents de combinar els medicaments ja existents i d’identificar els tumors i els pacients més adequats per a cada tipus de teràpia. El talent és necessari per a una carrera científica exitosa, però la curiositat i la passió pel coneixement són la benzina que alimenta el motor. Nascut a Texas el 1948 i fill d’un metge rural, Jim Allison es va plantejar estudiar medicina però va decidir que volia fer una carrera científica i es va graduar en microbiologia. Molt aviat va perdre la seva mare i després un germà per càncer, i ell mateix ha sobreviscut a tres càncers, fets que sens dubte l’han motivat profundament en la seva vida professional. Convençut que els tumors s’adapten per evadir el sistema immunitari i desacreditat per molts col·legues durant dècades, aquest pioner va perseverar i va remar a contracorrent fins que va aconseguir demostrar que la immunoteràpia tenia un efecte clar sobre el creixement dels tumors. A més, és un entusiasta de la musica country i el blues, i toca l’harmònica en una banda formada per immunòlegs, que sovint amenitza les reunions científiques en les quals participa. Pel que fa a la seva activitat investigadora, el mateix Allison ha reconegut que durant els anys crucials de la seva trajectòria científica va tenir la sort de treballar en un centre de recerca bàsica dependent del prestigiós hospital MD Anderson que s’havia inaugurat feia poc a Smithville, un petit poble a una hora de camí d’Austin (Texas), i on no tenia responsabilitats acadèmiques ni administratives i disposava de total llibertat i recursos econòmics suficients per no haver de demanar ajuts competitius. Alguns dels altres Premis Nobel del 2018 tampoc no són aliens a les ciències de la vida. El francès Gérard Mourou i la canadenca Donna Strickland van ser guardonats amb el Premi
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
El Premi Nobel 2018 guardona la immunoteràpia del càncer
Nobel de Física per una nova tècnica per generar impulsos làser ultracurts i d’alta intensitat, que han derivat en diferents aplicacions mèdiques i industrials. El premi l’han compartit amb el nord-americà Arthur Ashkin, descobridor d’unes pinces òptiques que permeten, entre altres coses, atrapar bacteris sense lesionar-los. Cal esmentar que en els cent set anys d’història del Nobel de Física, només en tres ocasions s’ha atorgat a una dona, la darrera ve-
gada el 1963. Pel que fa al Nobel de Química, també va estar compartit per Frances H. Arnold, investigadora de l’Institut Tecnològic de Califòrnia (Caltech), pionera en evolució dirigida d’enzims, que ha millorat la producció de productes farmacèutics o biocombustibles, amb George P. Smith i Sir Gregory P. Winter, per l’ús de virus bacteriòfags (fags) en la producció de nous medicaments. Aquesta edició dels Nobel també ha estat atípica per un altre
Bibliografia Brunet, J. F. [et al.] (1987). «A new member of the immunoglobulin superfamily – CTLA-4». Nature, 328: 267-270. Leach, D. R. [et al.] (1996). «Enhancement of antitumor immunity by CTLA-4 blockade». Science, 271: 1734-1736. Martin, P. J. [et al.] (1986). «A 44 kilodalton cell surface homodimer regulates interleukin 2 production by activated human T lymphocytes». J. Immunol., 136: 3282-3287. Nishimura, H. [et al.] (1999). «Development of lupus-like autoimmune diseases by disruption of the PD-1 gene encoding an ITIM motif-carrying immunoreceptor». Immunity, 11: 141-151. Okazaki, T.; Honjo, T. (2007). «PD-1 and PD-1 ligands: From discovery to clinical application». Int. Immunol., 19: 813-824. Ribas, A. [et al.] (2019). «Combined BRAF and MEK inhibition with PD-1 blockade immunotherapy in BRAF-mutant melanoma». Nat. Med., 25: 936-940. Tang, J. [et al.] (2018). «Comprehensive analysis of the clinical immuno-oncology landscape». Ann. Oncol., 29: 84-91.
Jordi Barquinero (Reus, 1959) és llicenciat en medicina per la Universitat Autònoma de Barcelona (1982), especialista en medicina interna i doctor per aquesta mateixa universitat el 1992. Ha fet estades formatives a la Universitat de Louisville i al Fred Hutchinson Cancer Research Center (Seattle, EUA). Des del 2001 és investigador al Vall d’Hebron Institut de Recerca (VHIR), on ha treballat en diferents aspectes de la teràpia gènica. Es vicepresident primer de la SCB.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 89
motiu, el fet que no es va lliurar el guardó de literatura, ajornat per l’escàndol que envoltà l’Acadèmia Sueca, la institució que l’atorga. La decisió es va prendre després que un diari publiqués la denúncia de divuit dones per abusos contra una persona, posteriorment identificada com Jean-Claude Arnault, artista francès vinculat a l’Acadèmia a través del seu club literari i casat amb Katarina Frostenson, membre de l’Acadèmia.
89
29/3/21 14:58
El fet
Microfibres tèxtils de plàstic: de la rentadora al plat Anna Sanchez Vidal
Anem al supermercat amb la bossa de cotó i la carmanyola de vidre, comprem la fruita a granel, emplenem la cantimplora amb aigua de la font, i reciclem tot el plàstic que ens arriba a les mans. Però la nostra petjada en plàstic és més gran del que pensem per culpa de les microfibres amb les quals fabriquem la roba. Des de l’impermeable i el folre polar amb què ens abriguem a l’hivern o la samarreta transpirable d’anar al gimnàs i fins a les cortines o la catifa del menjador. Les microfibres tèxtils de polietilè, polièster, polipropilè o poliamida, de colors vius i pocs mil·límetres de longitud, s’alliberen durant el procés de producció, ús i rentat i són, actualment, ubiqües al nostre planeta.
La contaminació del medi marí per plàstics derivats del petroli i el seu impacte als organismes que hi viuen rep actualment un interès considerable de la comunitat científica. Els microplàstics, definits com aquelles partícules de plàstic de mida inferior a 5 mm, han estat abocats contínuament al medi marí des dels anys trenta com a conseqüència del seu ús en cosmètica, pintura, o pèl·lets industrials, o deriven de la fragmentació d’objectes més grossos. Com que han estat dissenyats per ser durables, els microplàstics persisteixen al medi ambient durant llargs períodes de temps, i s’acumulen actualment arreu del planeta (Thompson et al., 2004). El gran nombre d’incògnites sobre la seva distribució i les perilloses implicacions per als organismes marins i la nostra pròpia salut ha despertat recentment molt interès públic. Però es presta poca atenció a les microfibres de plàstic que s’alliberen durant el procés de producció, ús i rentat de la roba o productes tèxtils sintètics. L’estrès mecànic i químic als quals la roba sintètica és sotmesa durant el procés de rentat provoca el desenganxament i l’alliberació de microfibres del fil sintètic que constitueix el producte tèxtil. Cada rentadora pot alliberar entre 124 i 308 mg de plàstic per kg de roba ren-
90
Revista TSCB 70.indd 90
tada, o entre 640.000 i 1.500.000 microfibres de mida mil·limètrica (De Falco et al., 2019). Degut a les seves dimensions, una part de les microfibres alliberades a les aigües residuals passen directament de la planta de tractament d’aigües residuals al medi aquàtic i són abocades als oceans. Si són microfibres de polietilè o polipropilè, que són polímers menys densos que l’aigua de mar, flotaran i seran transportades pels corrents marins fins a arribar a zones de convergència com per exemple el centre dels girs subtropicals. Si són microfibres de polièster o poliamida, polímers més densos que l’aigua de mar, s’enfonsaran i seran escombrades i transportades per diferents processos oceanogràfics cap a les fondalades marines aprofitant els conductes naturals que són els canyons submarins, i s’acumularan a mar obert a grans profunditats (Sanchez-Vidal et al., 2018). El transport aeri és també un mecanisme important de dispersió de microfibres cap a zones remotes, i la neu i la pluja actuen com a vies de transport de microfibres de l’atmosfera al medi marí. Les microfibres són, per tant, ubiqües al nostre planeta, i ja es troben en rius, llacs i oceans, en sòls de zones deshabitades i sediments costaners i profunds, i en gel marí àrtic, pluja i neu. Sovint, aquestes microfibres són ingerides pels organismes marins, sigui de manera accidental o perquè les confonen amb aliments. La ingestió de microfibres tèxtils per part de diferents organismes i en diferents ecosistemes està ben documentada: se n’ha observat en una àmplia diversitat d’organismes incloent plàncton, bivalves, crustacis, cnidaris de grans profunditats i peixos. Se sap, per exemple, que aproximadament el 40 % dels individus de gamba vermella pescats a la costa catalana, un dels nostres recursos naturals més preuats, tenen microfibres a l’estómac (Carreras-Colom et al., 2018). Però l’impacte físic o toxicològic concret de les microfibres en els organismes és desconegut, i pot dependre d’una àmplia gamma de factors, com ara les característiques de les microfibres (mida, abundància) o les substàncies químiques que duguin absorbides (metalls, bifenils policlorats, contaminants orgànics persistents), així com la fisiologia i l’ecologia (mida, tipus d’alimentació) dels organismes marins.
Microfibra de polièster obtinguda al fons de l’oceà Atlàntic. Fotografia: Lucy Woodall, del Museu d’Història Natural de Londres.
L’augment de la temperatura dels oceans, l’acidificació, la sobrepesca, la contaminació per abocaments industrials, hidrocarburs, nutrients, metalls pesants o plàstic són algunes de les grans amenaces dels ecosistemes marins. Com que el plàstic és un dels contaminants més persistents i abundants, la reducció en l’entrada al medi marí hauria de ser de màxima prioritat. Tenint en compte que és impossible netejar de microfibres els oceans, la reducció dels nivells desorbitats de consum de productes tèxtils sintètics ha de ser una prioritat de tots els agents implicats en aquest àmbit —consumidors, empreses, institucions— abans no introduïm alteracions irreversibles als fràgils ecosistemes marins. Siguem-ne conscients abans de rentar la roba o renovar el vestuari aquesta propera temporada: les microfibres sintètiques ens acaben arribant al plat.
Bibliografia Carreras-Colom, E. [et al.] (2018). «Spatial occurrence and effects of microplastic ingestion on the deep-water shrimp Aristeus antennatus». Marine Pollution Bulletin, 133: 44-52. De Falco, F. [et al.] (2019). «The contribution of washing processes of synthetic clothes to microplastic pollution». Scientific Reports, 9: 6633. Sanchez-Vidal, A. [et al.] (2018). «The imprint of microfibres in southern European deep seas». PLoS ONE, 13 (11): e0207033. Thompson, R. C. [et al.] (2004). «Lost at sea: Where is all the plastic?». Science, 304: 838.
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Ciència en societat
Cantata del genoma David Jou
Simbòlicament, la lectura del genoma humà és una icona cultural de primer ordre, per les esperances que suposa, pels coneixements que exigeix, per les preguntes que planteja, per la història que revela, per les possibilitats mèdiques que obre, per l’expectació que ha suscitat en el públic, per l’estímul que representa per a la imaginació, pels reptes ètics que suscita… És lògic que sigui una font d’inspiració per a la poesia i les arts, i no tan sols per a la ciència i l’assaig. En concret, les estrofes d’aquesta cantata aborden diversos aspectes del genoma, sobretot els més conceptuals i menys especialitzats, i es deixen dur pel seu esclat de suggeriments. Com un huracà de paraules dites i no dites, proclamades o secretes, enterrades en totes les cèl·lules, una història del món, un llenguatge comú de la vida —quin gust sentir-lo cantar, amb veu rogallosa d’enigma, laberíntic, bifurcat, sinuós, en la seva tenebra brillant de quatre colors, d’adenina, timina, guanina i citosina. A les palpentes, de naufragi en naufragi, però multiplicant-se a cada victòria, esdevenint un portador de llamps que han il·luminat camins nous i que han caigut, de vegades, en desús durant mil·lennis, en una metralla de derrotes i supervivències, en un bricolatge d’oportunitats imprevisibles.
És aquí, en aquesta llengua mai extenuada, en aquesta veu més viva que la veu de cap vivent, on podem escoltar les fosques paraules dels orígens, furiosament dempeus encara: les nostres arrels animals, la nostra ascendència bacteriana, sentir-nos propers a tantes altres vides i sorprendre’ns de l’estret estimball entre els ximpanzés i nosaltres, dels gens que van eixamplar el còrtex del cervell i obriren el camí cap a la parla, de les grans migracions humanes que encara bullen al fons dels mitocondris i incrusten el mapa del món i el pou de les edats en cadascuna de les cèl·lules. De cromosoma en cromosoma descobrim en els gens i en els silencis el lloc de cada mot i de cada pausa, la longitud finita dels somnis infinits, i busquem en quins llocs l’atzar pot despertar les urpes que posaran a cavalcar la mort dintre nostre, o quina lletra fallida entrebancarà la cançó i en farà un balbuceig dolorós i patètic, i ens rebel·lem contra la fosca tirania de destins que fins ara ens condemnaven a heretar sinistres malalties.
Hèlix i cristall, llenguatge i geometria, desvelen ara llarguíssimes seqüències, arxipèlags de sentit en una mar sense sentit, gens que codifiquen proteïnes: ritmes i estructures, màquines i bigues, xarxes subtilíssimes de química frenètica o pausada, arquitectures sempre en moviment.
Bibliografia Bueno, D. (2015). Cent gens que ens fan humans. Valls: Cossetània. Jou, D. (2019). Les escriptures de l’Univers: Poemes sobre ciència. Barcelona: Viena. Marfany, G.; Soley, M. (2011). Per què envellim? La resposta de la ciència a una vella pregunta humana. Barcelona: Publicacions de la Universitat de Barcelona.
En aquest llarg camí d’una hèlix que puja i una hèlix que baixa, en aquesta llarga escala de paraules que s’eclipsen tan sovint en cacofonies sordes que no sabem comprendre, en aquest garbuix d’hèlixs i de nusos, d’enllaços i de càrregues, quines ressonàncies hi ha entre fragments insospitats?, com es pleguen sobre si les proteïnes per fer-se intel·ligibles a la cèl·lula?, com es van desvetllant els gens a mesura que creix l’organisme i un sol missatge esclata poderosament en tanta diversitat de teixits i d’òrgans?,
Mosques, cucs, bacteris, ratolins han estat els nostres llibres de lectura on hem après, dificultosament, a llegir i a comprendre aquesta escriptura que ens escriu des de l’ombra amb ferocitat de fam i subtilesa d’orfebreria. Homenatge a la gran aventura de voluntat i d’esforç, d’intel·ligència i coratge, i als éssers innocents i diminuts trencats i despenyats en el camí vertiginós cap al saber! Però quin saber gosarem mirar de fit a fit si ens anuncia la derrota, la demència o el dolor? No seria millor ignorar plàcidament, viure en el goig sense anticipar l’hora funesta del desastre, confondre’ns confiadament amb el món sense el llast i l’estigma d’un saber dolorós? Però la nostra perplexitat va encara més enllà, i ens sentim exiliats i perduts en la riquesa de tant de saber, de tantes possibilitats que de cop ens són ofertes: què podrem escriure, ara que en comencem a aprendre, amb tot aquest llenguatge vast i ple de dubtes? Jugarem amb arrogància a ensenyorir-nos de la vida? Saltarem sense prudència al pou fosc de futurs inconcebibles? Ens abeurarem en miratges d’utopies i somnis de domini? O comprendrem millor el nostre ser miraculós i mortal, i sabrem lligar saber i amor, estudi i solidaritat, plaer i treball, i fondre amb harmonia el nostre cos àvid i efímer amb el cos lluminós de la natura que ens volta i ens desborda?
Barcelona, 2005
David Jou i Mirabent (Sitges, 1953) és membre de la Secció de Ciència i Tecnologia de l’Institut d’Estudis Catalans, i catedràtic de física a la Universitat Autònoma de Barcelona. Ha publicat sis llibres i dos-cents cinquanta articles de recerca en termodinàmica fora de l’equilibri. Com a poeta, ha publicat vint-i-sis llibres, alguns dels quals traduïts a diverses llengües, on la ciència té una presència considerable, especialment en els llibres Joc d’ombres, El color de la ciència, Bestiari i Les escriptures de l’Univers. Ha publicat deu assaigs, entre els quals El laberint del temps, la simfonia de la matèria, Cerebro y universo (dos cosmologías) i Introducción al mundo cuántico.
Treballs de la Societat Catalana de Biologia
Revista TSCB 70.indd 91
com s’ajusten els ritmes diversos dels gens al ritme potent d’una sola coral?, com es posà en marxa tota aquesta portentosa maquinària?
91
29/3/21 14:58
Lectura
La ciència i les conseqüències L’esperit del temps Martí Domínguez Edicions Proa Barcelona, 2019, 431 pàgines
L’any 1973 el Premi Nobel de Fisiologia o Medicina va recaure en tres científics als quals es reconeixia els descobriments sobre patrons de comportament individuals i socials. Nikolaas Tinbergen havia nascut el 1907 a la Haia; durant la Segona Guerra Mundial, la Gestapo el va empresonar perquè era membre de la resistència holandesa. Karl von Frisch havia nascut a Viena el 1886, i els nazis el van perseguir perquè tenia un besavi jueu. El tercer, Konrad Lorenz, nascut a Viena el 1907, sovint és considerat el pare de l’etologia; va afiliar-se al partit nacionalsocialista a principis dels anys trenta i se sap que va passar part de la guerra treballant en un hospital psiquiàtric a Poznan i els últims temps com a metge al front rus, on va ser capturat i empresonat quatre anys en camps soviètics. Retornat a Àustria, es va reincorporar a la universitat i va fer una carrera acadèmica que culminaria amb el Premi Nobel. Lorenz va morir el 1989; l’any 2015 la Universitat de Salzburg li va revocar el títol de doctor per haver ocultat el passat nazi.
Martí Domínguez ha resseguit a fons la figura de Lorenz i n’ha novel·lat la història, la seva història esborrada dels anys del nazisme, fins a construir un personatge de ficció ple de clarobscurs que arrosseguen el lector a fer-se les preguntes més torbadores. Domínguez té la traça de no donar nom al personatge, cosa que reforça l’afirmació que ha escrit una obra de ficció basada en fets reals, amb què obre la breu nota final d’agraïments. La majoria de companys de viatge del protagonista de L’esperit del temps, especialment els metges, els
92
Revista TSCB 70.indd 92
universitaris i els científics amb qui coincideix tot al llarg del relat (Knoll, Hetzer, Hippius, Stavenhagen) són, ells sí, personatges històrics, als quals la novel·la posa carn i ossos i sovint una cruesa a l’alçada dels fets que van viure. És el protagonista mateix de la novel·la qui ens explica la seva vida. Domínguez construeix un ardit que, a través d’un singular joc de miralls, farà que ens creguem prou el que explica. Quan el capturen els russos, l’obliguen a relatar els seus crims sense amagar-se’n, i no ferho li hauria costat una execució sumària. D’aquesta manera reconstrueix els inicis de la carrera acadèmica i l’afiliació al partit de Hitler, l’èxit de les seves teories sobre el comportament animal, que semblaven donar base científica al racisme i a les polítiques que els nazis en van derivar, i la seva participació en les pràctiques de germanització a Polònia i a Belarús. No s’excusa de la seva recerca científica, ni tan sols de les seves idees, però mira de distanciar-se de l’aplicació pràctica o de la utilització que se’n va fer (per exemple als anomenats Lebensborn), de les quals es presenta més aviat com un espectador forçat. D’aquesta manera sorgeix alguna cosa semblant a un dubte sobre la bondat de les seves pròpies teories. Un dubte, però, que no va gaire més enllà, que en cap cas no evoluciona cap al sentiment de culpa o la necessitat de perdó. Aquesta, si més no, és la impressió que, a parer meu, es desprèn sobretot dels últims capítols, escrits ja en llibertat, després d’haver obtingut el Premi Nobel, sense necessitat de justificar-se, en un to que recorda el dels llibres publicats per Lorenz després de la guerra, que el van fer fins a cert punt popular i que el durien a ser fins i tot un autor de referència del moviment ecologista. I així ens trobem amb els temes de fons de L’esperit del temps. Fins a quin punt podem considerar que la ciència és neutra? Fins a quin punt el científic pot desresponsabilitzar-se de les conseqüències de les seves teories i, sobretot, de l’aplicació pràctica que se’n pugui fer? No són preguntes noves, però per respondre-hi
amb una mínima serietat i lluny dels tòpics cal estar atents a tota la informació que el novel· lista ens fa arribar de la ploma del seu personatge: no són les primeres teories de Lorenz sobre el comportament animal, fruit de l’observació en viu i en llibertat, sinó la seva ideologia racista, que se’n servia, el primer pas en fals que fa el científic, que viurà, finalment, esbalaït i més aviat sorprès, les conseqüències que arribaran a tenir en mans dels més devots d’aquella mateixa ideologia, sempre revestida d’una racionalitat extrema. L’esperit del temps ha estat reconeguda amb el Premi Òmnium a la millor novel·la de l’any 2019. Martí Domínguez, doctor en biologia per la Universitat de València i director des del 1999 de la revista Mètode, serveix amb solvència un relat que no era fàcil de fer. I que obre la porta a d’altres preguntes sense resposta fàcil: el passat nazi de Lorenz invalida l’aportació que li va fer merèixer el Premi Nobel, al costat dels seus companys de recerca, víctimes ells en alguna mesura del nazisme? Oriol Izquierdo
Treballs de la Societat Catalana de Biologia
29/3/21 14:58
Treballs de la Societat Catalana de Biologia, revista anual de la SCB Societat Catalana de Biologia, filial de l’Institut d’Estudis Catalans Carrer del Carme, 47. 08001 Barcelona scb@iec.cat
cietat
de la So
a de Biologia t Catalan de la Societa treballs
ciutadana fera te de ciènciaIRBio i Natus at, un projec de ciènci Flaixos s de Barcelona, Ciència en Societ de 67 Líquen col·laboració 0 amb la Seguí m 70, 202 nia? Sala a simple Laura Forcega entre la posidòoza no implic Montserrat inero Mend s’ama menut 69 Què m Castro i Tina torial. Maria Jordi Barqu oniae: quan la SCB. Guille ació acó de lasma pneum de divulg 70 Mycopica Lloréns Rico s, una proposta rca Verón Pirineu de rece ures dels territori Dinosa al stacats ca 73 rola t al futur: tològi Figue sé paleon amaga art i Pere del passat miran , Cèlia Marra ue el mar sc Peters Àngel Galob a, la ciència France evolutiva tologi Pròleg errat Sala, 76 Paleon paleobiologia les Maria Monts a cap a una Moyà-Solà indispensab Estrad gia 2018 d’Ecologia ts de vida a Castillo i Marta Salvador s: trosse Margalefn Margalef d’Ecolo planet Yaiza M. Ramon i Virus marin nament del ayor-Garcia i Prem Premi Ramo per al funcio , Ana Sotom Entrevistan R. Carpenter, Vaqué Dolors 79 Stephe l ià robòtica microb Bru Papel ro 2019 cirurgia 8 Un marMontserrat Sala s l i Rome tàctil en io a Rosel a a percepció Maria adors marin z Asens Gemm depred Premi ogia hàptic Antonio Alcara 12 Petits n Massana es Cos, 81 De tecnol Ramo colors d’algu Yscadar ls sèssils Arturo d’aigua, idal per anima ell-Simón l Puig-V 18 Colors let dominades i Mane a Vendr Elisa Berdaitats marines nt per Epicur r, Begoñ passa Salaza Linné comun ea s? 27 Les -Maria Gili, Janire Centre urtra: de Goeth ics marin Josep oso ismes antàrt r 84 Marim M. Camarasa o Ambr ina 2018 pia del cànce i Stefan en els organgel Josep Medic o defens noterà el es ogia n, Paula 33 Com químiques sota de Fisiol guardona la immu Martín-Martí o-Preckler Nobel Armes Premi Nobel 2018 Àvila, Rafael Carlos Angul Conxita -Fernández i 87 El Premi inero ens visitenNatàlia Amigó Jordi Barqu de Castro ts marins que ora al plat lada, d Degol : de la rentad ultura 39 Els gegan Tort, Eduar de plàstic icar l’aqüic El fet Beatriu Peters ibres tèxtils comun sc 90 Microf Sanchez Vidal i France a la realitat: com ts s flotan Anna mites Flos dels plàstic 45 Dels es Reig i Rosa at màtica societ Lourd rejón proble en la Ciència ta del genoma sco Ruiz-O benestar em veus: oceans 51 Ara nostres mars i i Luis Francia la salut i el 91 Canta Jou en els , Juan Ramis marins per David Rafael Sardá ecosistemes cis dels üències 60 Benefi persones o Lectura i les conseq Carreñ de les i Arnau 92 La ciència rdo Josep Lloret Oriol Izquie
i vols… logia ocies? is a la bionços cat t’hi ass teress rers ave de seminar què no p://scb.iec. ades... Si t’in er els dar anització ...per htt os i jorn
1912 2012
PLACA NARCÍS
OL
MONTURI
2003
CREU DE SANT JORDI
2012
Volum
70
curs ...conèix par en l’org llibres, ...partici la revista ptes en ...rebre de descom ...gaudir
ls
trebal
cia
ts de cièn Destaca a
70 l Vo·lum revista anua impresa) 2020
3037 (edició l) ISSN 0212- 9802 (edició digita ISSN 2013-
Catalana
logia
de Bio
1) Coll de titanosaure (p. 74). 2) Braç robòtic amb control hàptic (p. 82). 3) Filament de Dolichospermum (=Anabaena), cianobacteri d’aigua dolça (p. 20). 4) Flagel·lat heteròtrof marí (p. 14). 5) Recreació d’un titanosaure (p. 73). 6) Liquen, Lecanora campestris (p. 68). 7) Comunitats bentòniques antàrtiques (p. 36).
La propietat intel·lectual dels articles és dels autors respectius. La SCB està exempta de tota responsabilitat derivada de l’eventual vulneració de drets de propietat intel·lectual per part dels autors. Els continguts publicats a la revista estan subjectes —llevat que s’indiqui el contrari en el text o en el material gràfic— a una llicència Reconeixement - No comercial Sense obres derivades 3.0 Espanya (by-nc-nd) de Creative Commons, el text complet de la qual es pot consultar a http://creativecommons.org/licenses/by-nc-nd/3.0/ es/deed.ca. Així doncs, s’autoritza el públic en general a reproduir, distribuir i comunicar l’obra sempre que se’n reconegui l’autoria i l’entitat que la publica i no se’n faci un ús comercial ni cap obra derivada. treballs de la societat catalana de biologia no es fa responsable de les idees i opinions exposades pels autors dels articles publicats.
© Societat Catalana de Biologia, filial de l’Institut d’Estudis Catalans, per a aquesta edició Dipòsit Legal B 12164-1963 ISSN 0212-3037 (ed. impresa) 2013-9802 (ed. digital) Web de la versió digital: http://revistes.iec.cat/index.php.TSCB
COMITÈ DE PUBLICACIONS Maria Montserrat Sala, presidenta, ICM-CSIC Ricard Roca, vocal, SCB Rafel Abós-Herràndiz, vocal, ICS Josep M. Espelta, vocal, UAB
Imprès per Ediciones Gráficas Rey, SL
EQUIP EDITORIAL Oriol Izquierdo, cap editorial Maria Montserrat Sala, redacció editorial Unitat de Correcció Editorial, IEC, correcció
La Societat Catalana de Biologia (SCB) és una de les filials més antigues de l’Institut d’Estudis Catalans. Està regida per un Consell Directiu i organitzada en seccions especialitzades, que són les que organitzen les activitats principals que duu a terme la Societat. CONSELL DIRECTIU DE LA SCB
SECCIONS
Presidenta: Montserrat Corominas Vicepresident primer: Jordi Barquinero Vicepresident segon: Marc Martí-Renom Secretari general: Albert Jordan Vicesecretari: Oriol Cabré Tresorera: Marina Rigau Vocal d’Acció Territorial: Eduard Escrich Vocal de Comunicació: Raúl Delgado Vocal d’Ensenyament: Jordi Morral Vocal de Promoció: Oriol Iborra Vocals de Publicacions i Lexicografia: Maria Montserrat Sala Vocal de Seccions: Josep Saura Delegat de l’IEC: Jaume Bertranpetit
Aqüicultura: Nerea Roher Biofísica: Àlex Perálvarez Bioinformàtica i Genòmica: Roderic Guigó Biologia del Desenvolupament: Francesc Cebrià Biologia Evolutiva: Josefa González Biologia Molecular: Joan Roig Biologia del Càncer: Oriol Casanovas Biologia i Societat: Laura Castarlenas Biologia de la Reproducció: Rafael Oliva Cromatina i Epigenètica: Albert Jordan Ecologia: Josep Maria Espelta Ensenyament: Jordi Morral Biologia de Plantes: Anna Caño Microbiologia: Eduard Torrents Neurobiologia Experimental: Carles Saura Senyalització Cel·lular i Metabolisme: Laura Herrero Virologia: Núria Busquets SCB a Alacant: Sergi Soriano SCB a Balears: Anna Traveset i Núria Marbà SCB a Catalunya Sud: Jaume Folch i Miguel Mulero SCB a Castelló: Vicent Arbona i Ferran Martínez-Garcia SCB a Girona: Elisabeth Pinart i Enrique Verdú SCB a Lleida: Judit Ribas SCB a València: Lluís Pascual SCB a Vic: Julita Oliveras
Coberta TSCB-70.indd 2
NORMES DE PRESENTACIÓ D’ARTICLES PER ALS AUTORS DE TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA RULES FOR SUBMISSION OF ARTICLES BY AUTHORS TO TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA Abast La revista treballs de la societat catalana de biologia (Treb. Soc. Cat. Biol.), editada per la Societat Catalana de Biologia (SCB), filial de l’Institut d’Estudis Catalans (IEC), publica articles de l’àmbit de les ciències de la vida en llengua catalana (i ocasionalment en altres llengües). Aquesta revista consta de dues seccions: — «Destacats de recerca». Conjunt d’articles de recerca o de revisió sobre un tema monogràfic que tracta d’alguna qüestió científica concreta. Un coordinador, expert en el tema, encarrega els articles a un equip d’autors i en supervisa la redacció. Si voleu fer de coordinador d’un tema del vostre interès per als «Destacats de recerca», poseu-vos en contacte amb la secretaria de la SCB (scb@iec.cat). — «Destacats de ciència». Conjunt d’articles de divulgació, d’actualitat i d’opinió científica sobre temes diversos. Si voleu proposar un article per als «Destacats de ciència», poseu-vos en contacte amb la secretaria de la SCB (scb@iec.cat). Els autors que també siguin socis de la SCB tenen preferència en el procés d’acceptació dels articles.
Scope The journal treballs de la societat catalana de biologia (Treb. Soc. Cat. Biol.), published by the Societat Catalana de Biologia (SCB), a subsidiary of the Institut d’Estudis Catalans (IEC), releases articles in the field of life sciences in the Catalan language (and occasionally in other languages). The journal comprises two sections: — “Destacats de recerca”: articles in the field of research or a monographic review of a topic in a specific scientific field. A coordinator expert in the field commissions the articles to a team of authors and supervises the drafting process. If you would like to take part as a coordinator for a topic of your interest for the “Destacats de recerca” section you can contact the SCB secretary at scb@iec.cat. — “Destacats de ciència”: articles about popular science, current affairs and scientific opinion on a range of topics. If you would like to propose an article for the “Destacats de ciència” section you can contact the SCB secretary at scb@iec.cat. Authors who are also SCB members have preference in the article admission process.
Procés editorial Els articles, un cop rebuts, se sotmeten a un procés de revisió externa de forma i de contingut. En acabat, poden ser: a) acceptats sense canvis, b) rebutjats o c) acceptats amb esmenes proposades als autors. En aquest darrer cas, és un requisit indispensable per a publicar-los que l’autor accepti introduir les esmenes proposades. Els autors rebran unes galerades perquè les revisin. En aquest procés només poden introduir-hi esmenes de caràcter lingüístic i tècnic, però no de contingut. En casos especials, la SCB podrà demanar als autors revisions addicionals. Els autors rebran sense càrrec un exemplar de la revista un cop publicada.
Publishing process Upon receipt, articles undergo a peer review of form and content. Once this process is complete, the articles may: a) be accepted without changes; b) be rejected; or, c) be accepted, albeit with the author being advised to make amendments. In the latter case, authors must agree to make the changes proposed in order for the articles to be published. Authors will be given galley proofs in order to review them. At this stage of the process they will only be able to make technical or linguistic amendments and not changes related to content. In specific circumstances, the SCB may ask authors to carry out additional reviews. Authors will receive a copy of the journal free of charge once it has been published.
Criteris generals de presentació d’articles Els autors en el moment de lliurar els articles per a sol·licitar-ne la publicació accepten els termes següents: — Els autors cedeixen a la SCB els drets de reproducció, comunicació pública i distribució dels articles presentats per a ser publicats a treballs de la societat catalana de biologia. — Els autors responen davant la SCB de l’autoria i l’originalitat dels articles presentats. — És responsabilitat dels autors l’obtenció dels permisos per a la reproducció de tot el material gràfic inclòs en els articles. Els articles han de tenir l’extensió demanada (tenint en compte que cal incloure els espais en blanc en el comptatge de caràcters) i el nombre de taules i de figures ha de ser el mínim imprescindible per a facilitar la comprensió del text. En cas que la llargària no s’adeqüi als criteris especificats o que el nombre de taules o figures es consideri excessiu, la SCB podrà proposar canvis pel que fa a aquests aspectes abans d’acceptar l’article. Els articles s’han d’enviar en un arxiu en format Microsoft Word o OpenDocument. Aquest arxiu ha de contenir només text (article, bibliografia, taules, peus, etc.). Les figures s’han d’enviar en arxius a part i, si contenen text (a part dels peus) ha d’estar en un format que permeti editar-lo. Si la taula o la figura té copyright, cal indicar-ho. La bibliografia s’ha de compondre tal com s’exemplifica tot seguit, per bé que, posteriorment, els editors adequaran tipogràficament aquestes referències a l’estil de la publicació: Codina, C. [et al.] (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. Mellado, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: Vicente, M.; Renart, J. (ed.). Ingeniería genética. Madrid: CSIC, 21-30. Wolffe, A. (1995). Chromatin structure and function. Londres: Academic Press. Les referències bibliogràfiques completes han d’aparèixer ordenades alfabèticament al final dels articles i, si contenen més de dos autors, cal escriure només el primer, seguit de la indicació et al. entre claudàtors. Les remissions a la bibliografia dins el text han de seguir el sistema de cognom i any, no pas un sistema numèric, i, si contenen més de dos autors, cal escriure només el primer, seguit de la indicació et al., en aquest cas sense claudàtors.
General criteria for submitting articles On submitting articles for publication, authors accept the following terms: — Authors assign to the SCB the rights of reproduction, communication to the public and distribution of the articles submitted for publication to treballs de la societat catalana de biologia. — Authors answer to the SCB for the authorship and originality of submitted articles. — Authors are responsible for obtaining permission for the reproduction of all graphic material included in articles. Articles must be of the required length (character counts must include spaces) and the number of tables and figures should be kept to a minimum in order to simplify understanding of the text. If the length is unsuitable for the specified criteria or if there are too many tables or figures, the SCB may propose changes concerning these areas before accepting the article. Articles must be submitted in Microsoft Office or OpenDocument format. The file should contain text only (the main article, references, tables, figure captions, etc.). Fi gures must be sent in separate files and if they incorporate text (aside from captions) the file format must allow for them to be edited. If a table or figure is copyrighted, this circumstance must be specified. References must be set out as shown below, although the editors may subsequently adapt them according to the definitive publishing style: Codina, C. [et al.] (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. Mellado, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». In: Vicente, M.; Renart, J. (ed.). Ingeniería genética. Madrid: CSIC, 21-30. Wolffe, A. (1995). Chromatin structure and function. London: Academic Press. Full bibliographic references must be set out in alphabetical order at the end of articles and, if they contain more than two authors, only the first author should be specified followed by the indication et al. in square brackets. References to the bibliography within the text must follow the author-year system rather than being in numerical order of appearance and, if they contain more than two authors, only the first author should be specified followed by the indication et al. without square brackets.
Criteris específics per als articles de «Destacats de recerca» Els articles de la secció «Destacats de recerca» han de tenir una extensió entre 20.000 i 30.000 caràcters i han d’incloure els apartats següents: títol; noms i cognoms dels autors; filiació de tots els autors; autor per a la correspondència (cal indicar-ne les adreces postal i electrònica, i el telèfon); resum en català (d’una extensió màxima de 1.000 caràcters); paraules clau en català (com a màxim cinc); títol, resum i paraules clau en anglès (que han de ser fidels, en extensió i contingut, als corresponents en català); text de l’article (amb un màxim de dos nivells d’apartats); bibliografia; taules, i peus de figura.
Specific criteria for articles in the “Destacats de recerca” section Articles in the “Destacats de recerca” section should be between 20,000 and 30,000 characters long and include the following information: title; authors’ names and surname; personal particulars of all authors; contact author (email, address and telephone number required); abstract in Catalan (1,000 characters maximum); keywords in Catalan (maximum of 5); title, abstract and keywords in English (which must be true to the Catalan versions in terms of length and content); main text of the article (with two sections of levels at the most); references; tables and figure captions.
Criteris específics per als articles de «Destacats de ciència» Els articles de la secció «Destacats de ciència» han d’incloure els apartats següents: títol (no acadèmic), subtítol (opcional, i aquest pot ser més acadèmic), noms i cognoms dels autors i filiació de tots els autors. A més, si n’hi ha, bibliografia, taules i peus de figura.
Specific criteria for articles in the “Destacats de ciència” section Articles in the “Destacats de ciència” section must include the following information: title (non-academic), subtitle (optional and may be more academic), authors’ names and surname and personal particulars of all authors. In addition, if applicable, references, tables and figure captions.
Protecció de dades personals L’Institut d’Estudis Catalans (IEC) compleix el que estableix el Reglament general de protecció de dades de la Unió Europea (Reglament 2016/679, del 27 d’abril de 2016). De conformitat amb aquesta norma, s’informa que, amb l’acceptació de les normes de publicació, els autors autoritzen que les seves dades personals (nom i cognoms, dades de contacte i dades de filiació) puguin ser publicades en el volum corresponent de treballs de la societat catalana de biologia. Aquestes dades seran incorporades a un tractament que és responsabilitat de l’IEC amb la finalitat de gestionar aquesta publicació. Únicament s’utilitzaran les dades dels autors per a gestionar la publicació de treballs de la societat catalana de biologia i no seran cedides a tercers, ni es produiran transferències a tercers països o organitzacions internacionals. Un cop publicada la revista, aquestes dades es conservaran com a part del registre històric d’autors. Els autors poden exercir els drets d’accés, rectificació, supressió, oposició, limitació en el tractament i portabilitat, adreçant-se per escrit a l’Institut d’Estudis Catalans (carrer del Carme, 47, 08001 Barcelona), o bé enviant un correu electrònic a l’adreça dades.personals@iec.cat, en què s’especifiqui de quina publicació es tracta.
Protection of personal data Institut d’Estudis Catalans (IEC) complies with the provisions of the General Data Protection Regulation of the European Union (Regulation 2016/679 of 27 April 2016). In accordance with this regulation, we state that, with the acceptance of the publication rules, authors authorise that their personal data (forenames and surnames, contact data and affiliation data) may be published in the respective volume of the journal treballs de la societat catalana de biologia. These data will be incorporated to a processing controlled by IEC for the purpose of managing this publication. The authors’ data will be used solely for managing the publication of the journal and they will not be transferred to third parties nor will transfers be made to third countries or to international organisations. Once the journal has been published, these data will be stored as part of the historical record of authors. Authors may exercise the rights of access, rectification, erasure, objection, restriction of processing and portability by addressing themselves in writing to Institut d’Estudis Catalans (Carrer del Carme, 47, 08001 Barcelona, Spain) or by sending an e-mail to the address dades.personals @iec.cat, in which the publication in question should be specified.
30/3/21 14:05
Volum 70, 2020
Destacats de ciència
2 Editorial. Maria Montserrat Sala El racó de la SCB. Jordi Barquinero
Flaixos de ciència 67 Líquens de Barcelona, un projecte de ciència ciutadana amb la col·laboració de Ciència en Societat, IRBio i Natusfera Laura Force Seguí 69 Què s’amaga entre la posidònia? Guillem Castro i Tina Mendoza 70 Mycoplasma pneumoniae: quan menut no implica simple Verónica Lloréns Rico 73 Dinosaures dels Pirineus, una proposta de divulgació paleontològica al territori Àngel Galobart i Pere Figuerola 76 Paleontologia, la ciència del passat mirant al futur: cap a una paleobiologia evolutiva Salvador Moyà-Solà
El que el mar amaga 3 Pròleg Maria Montserrat Sala, Francesc Peters, Cèlia Marrasé i Marta Estrada 4 Virus marins: trossets de vida indispensables per al funcionament del planeta Dolors Vaqué, Ana Sotomayor-Garcia i Yaiza M. Castillo 8 Un mar microbià Maria Montserrat Sala 12 Petits depredadors marins Ramon Massana 18 Colors d’aigua, colors d’algues Elisa Berdalet 27 Les comunitats marines dominades per animals sèssils Josep-Maria Gili, Janire Salazar, Begoña Vendrell-Simón i Stefano Ambroso 33 Com es defensen els organismes antàrtics marins? Armes químiques sota el gel Conxita Àvila, Rafael Martín-Martín, Paula de Castro-Fernández i Carlos Angulo-Preckler 39 Els gegants marins que ens visiten Beatriu Tort, Eduard Degollada, Natàlia Amigó i Francesc Peters 45 Dels mites a la realitat: com comunicar l’aqüicultura Lourdes Reig i Rosa Flos 51 Ara em veus: la problemàtica dels plàstics flotants en els nostres mars i oceans Rafael Sardá, Juan Ramis i Luis Francisco Ruiz-Orejón 60 Beneficis dels ecosistemes marins per a la salut i el benestar de les persones Josep Lloret i Arnau Carreño
treballs de la Societat Catalana de Biologia
Entrevista Premi Ramon Margalef d’Ecologia 79 Stephen R. Carpenter, Premi Ramon Margalef d’Ecologia 2018 Bru Papell Premi Gemma Rosell i Romero 2019 81 De tecnologia hàptica a percepció tàctil en cirurgia robòtica Arturo Yscadar Cos, Antonio Alcaraz Asensio i Manel Puig-Vidal Centre 84 Marimurtra: de Goethe a Linné passant per Epicur Josep M. Camarasa Premi Nobel de Fisiologia o Medicina 2018 87 El Premi Nobel 2018 guardona la immunoteràpia del càncer Jordi Barquinero
treballs de la Societat Catalana de Biologia
Destacats de recerca
El fet 90 Microfibres tèxtils de plàstic: de la rentadora al plat Anna Sanchez Vidal Ciència en societat 91 Cantata del genoma David Jou Lectura 92 La ciència i les conseqüències Oriol Izquierdo
ogia Si t’interessa la biolço s
i vols…
...conèixer els darrers aven ió de seminaris ...participar en l’organitzac ...rebre la revista . llibres, cursos i jornades.. es? ...gaudir de descomptes en ...per què no t’hi associ
1912 2012 Coberta TSCB-70.indd 1
PLACA NARCÍS
MONTURIOL
2003
CREU DE SANT JORDI
2012
Volum 70
http://scb.iec.cat
Volum 70 2020 · revista anual
ISSN 0212-3037 (edició impresa) ISSN 2013-9802 (edició digital)
30/3/21 14:05