12:14
Página 1
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN
03/03/09
TREB. SOC. CAT. BIOL., VOL. 60, 2009
Sobrecob 60 Soc Cat Bio
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN ARCADI NAVARRO I CARMEN SEGARRA EDITORS
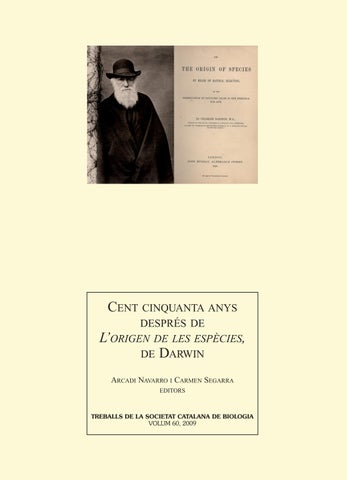
Il·lustració de la sobrecoberta Esquerra: Retrat de Charles Darwin (1809-1882).
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 60, 2009
Dreta: Portada de la primera edició (1859) del llibre On the origin of species by means of natural selection.
12:14
Página 1
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN
03/03/09
TREB. SOC. CAT. BIOL., VOL. 60, 2009
Sobrecob 60 Soc Cat Bio
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN ARCADI NAVARRO I CARMEN SEGARRA EDITORS
Il·lustració de la sobrecoberta Esquerra: Retrat de Charles Darwin (1809-1882).
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 60, 2009
Dreta: Portada de la primera edició (1859) del llibre On the origin of species by means of natural selection.
12:18
Página 1
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA
VOLUM 60, 2009
ÍNDEX
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN Reconstruint Darwin, cent cinquanta anys després . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. FONTDEVILA A partir d’un inici tan simple. L’origen de la vida: un problema de química amb història . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. PERETÓ Cèl·lules mínimes: evolució i disseny . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. GIL Estructura del genoma . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . T. MARQUÈS-BONET I L. ARMENGOL Elements transposables, de l’excepció a la norma . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . F. CASALS Polimorfisme nucleotídic i canvis adaptatius recents . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. AGUADÉ Com gens tan semblants generen morfologies tan diverses? El paper clau de la genètica del desenvolupament i la genòmica comparada en la visió darwiniana de l’evolució . . . . . . . . . . . . . . . . . . . . . . . . . . . J. BAGUÑÀ L’espècie horitzontal . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. FONTDEVILA Evolució cromosòmica i de la mida genòmica en els animals . . . . . . . . . . . . . . . . . . . . . . . . . . . . E. PETITPIERRE Domesticació en animals i evolució . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. PÉREZ-ENCISO La microevolució en acció: marcadors genètics del canvi climàtic . . . . . . . . . . . . . . . . . . . . . . . . L. SERRA Complint una intuïció de Darwin: genètica humana i llengües . . . . . . . . . . . . . . . . . . . . . . . . . . . D. COMAS, E. BOSCH I F. CALAFELL Paleogenòmica . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . C. LALUEZA-FOX The evolution of cooperation . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. SANTOS I E. SZATHMÁRY Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització . . . . . . . . . . . . . A. NAVARRO Darwinisme i creacionisme . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. BARBADILLA
7 31 45 57
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN
03/03/09
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN VOLUM 60, 2009
81 93
103 123 151 169
FILIAL DE L’INSTITUT D’ESTUDIS CATALANS
181 195 205 213 231 245
TREB. SOC. CAT. BIOL., VOL. 60, 2009
Cub. 60 Soc Cat Bio
BARCELONA 2009
Interior 59 Soc Cat Bio
2/3/2009
14:19
Página 1
NORMES DE PUBLICACIÓ DE TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA Abast. Treballs de la Societat Catalana de Biologia (Treb. Soc. Cat. Biol.) publica: a) monografies i revisions sobre temes de ciències de la vida encarregades per la Societat, i b) comunicacions presentades a les sessions ordinàries i extraordinàries organitzades per la Societat o les seves seccions especialitzades. Els temes poden ser proposats pels membres del Consell Directiu o per socis que desitgin ocupar-se de la preparació d’un volum de la revista fent d’editors. El Consell Directiu decideix si un tema és apropiat per dedicar-hi un volum de Treb. Soc. Cat. Biol. Idioma. Els originals seran redactats en català, excepte en casos justificats per als quals el Consell Directiu pugui acceptar una altra llengua. Lliurament dels originals. La submissió implicarà que el material és original i que no ha estat enviat, acceptat o publicat en cap altre lloc. Els originals els lliurarà l’editor del volum per correu electrònic (scb@iecat.net), adreçat al president del Consell de Redacció. Cal enviar els següents arxius, preferentment empaquetats amb ZIP: — Un arxiu únic en format RTF o MS Word anomenat Text_TSCB_[cognom de l’editor], amb tot el text del volum, incloent-hi, en aquest ordre: coberta, índex, presentació, els capítols en l’ordre desitjat i les seves taules, si n’hi ha. Les pàgines hauran d’anar numerades consecutivament començant per la núm. 1, que serà la de la coberta. Tot el text serà escrit íntegrament amb Times New Roman de cos 12 amb interlineat d’1,5. L’arxiu amb el text no podrà contenir figures ni objectes incrustats. — Un arxiu per cada figura anomenat Figura_[número de figura]_[cognom del primer autor]. Les figures, si no contenen text (a part del peu), es poden remetre en qualsevol dels formats gràfics habituals (PNG, JPEG, TIFF); si contenen text, s’han d’enviar en un format que permeti editar-lo (EPS, PDF, Powerpoint). — Cal enviar també una còpia impresa electrònica en format PDF de tot el volum, anomenada TSCB_[cognom de l’editor], amb tot el contingut, incloent-hi les figures. Aquest arxiu es farà servir com a text imprès de referència durant el procés de tractament del text. Per aquest motiu, els autors i l’editor han de tenir cura personalment que en aquesta còpia hi hagi tot el contingut imprès correctament, incloent-hi sobretot els símbols o caràcters especials, equacions, etc. Cada article o, en un volum monogràfic, cada capítol, incloent-hi la bibliografia, taules i figures, hauria de tenir una extensió entre quinze i vint fulls DIN A4, escrits amb el tipus, mida i interlineat esmentats abans. Només es podrà ultrapassar aquest límit amb l’acord previ del Consell de Redacció de Treballs de la SCB. Els volums monogràfics haurien de contenir un mínim d’uns deu capítols. El Consell de Redacció consultarà especialistes, els quals recomanaran si un article pot publicar-se immediatament, necessita revisió, o bé és rebutjat. Els autors rebran notificació de la decisió. Si el treball requereix revisió, es facilitaran als autors els comentaris escrits dels especialistes que l’hagin revisat. Estructura dels originals. Els originals que no s’ajustin a aquestes instruccions seran retornats als autors perquè els modifiquin abans de la seva tramitació. Dintre de cada capítol o article se seguirà el següent ordre pel que fa als diferents components:
— Títol, escrit en majúscules i negreta. — Nom i primer cognom de l’autor. Si n’hi ha més d’un, els seus noms aniran separats amb una coma. L’autor per a la correspondència s’identificarà amb un asterisc posat al final del seu cognom. — Adreça postal completa de tots els autors. Telèfon, fax i correu electrònic de l’autor per a la correspondència — Resum en català, d’un màxim de dues-centes paraules. — Paraules clau en català, màxim de cinc. — Resum en anglès (que, òbviament, haurà d’ésser traducció fidel del resum en català i haurà d’anar precedit de la traducció del títol del manuscrit). — Paraules clau en anglès, màxim de cinc. — Text, que, si és una revisió, podrà estar dividit fins a dos nivells en els apartats (no numerats) que es creguin més oportuns. Si es tracta d’un article de recerca, el manuscrit haurà d’incloure Introducció, Materials i mètodes, Resultats i Discussió. No es podran fer servir notes a peu de pàgina ni text subratllat. — Agraïments, si escau. — Referències, segons el format indicat més endavant. — Taules. Portaran un títol descriptiu breu i aniran numerades correlativament amb números àrabs. Una taula per full. — Text de peus de figures. Il·lustracions. Les il·lustracions cal que siguin de bona qualitat i contrast, tenint en compte la possible reducció, ja que, a causa del format de la revista, un cop publicades poden ésser, com a màxim, de 14 cm d’ample per 19 cm d’alt. Totes les il·lustracions seran en blanc i negre, excepte en cas que el color sigui essencial per a comprendre’n el significat. Atès que la publicació de fotografies en color encareix molt el procés editorial, els autors que desitgin incloure alguna fotografia en color hauran de pagar les despeses extra. En cas que les taules o figures hagin estat publicades anteriorment, caldrà indicar-ne la procedència i, si escau, el copyright. Referències. Totes les referències, tant publicades com en premsa, citades al text, hauran d’ésser incloses a la llista de referències, ordenades alfabèticament. En el text s’indicaran els noms dels autors i l’any de publicació per ordre cronològic; en el cas que una referència tingui més de dos autors, se citarà el primer seguit d’et al. A continuació hi ha exemples de l’estil que s’ha de seguir per a citar articles, capítols o monografies. CODINA, C.; VILADOMAT, F.; BASTIDA, J.; LLABRÉS, J. M. (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. MELLADO, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: VICENTE, M.; RENART, J. Ingeniería genética. Madrid: CSIC, 21-30. WOLFFE, A. (1995). Chromatin structure and function. Londres: Academic Press. Proves d’impremta i extrets. De tots els originals acceptats, l’autor de correspondència en rebrà unes proves d’impremta per a corregir-les, i aquestes proves hauran d’ésser retornades, per correu urgent, a: Secretaria de la Societat Catalana de Biologia, c/ Maria Aurèlia Capmany, 14-16, 08001 Barcelona (tel. 933 248 584; fax 932 701 180; a/e: scb@iec.cat) dins el termini màxim d’una setmana. En les proves no podran ésser introduïdes correccions d’estil, i només hi seran admeses les de caràcter ortogràfic i tècnic. Un cop publicat l’article, es lliuraran a l’autor vint extrets sense càrrec.
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA INSTRUCTIONS FOR AUTHORS Scope. Treballs de la Societat Catalana de Biologia (Treb. Soc. Cat. Biol.) publishes: a) monographs and reviews on life sciences topics commissioned by the Society; and b) lectures presented at both ordinary and extraordinary sessions organized by the Society or their specialized sections. Submission of originals. Submission implies that the material is original and that has not been submitted, accepted or published elsewhere. Originals will be submitted by the editor of the volume to the following e-mail address scb@iecat.net addressed to the President of the Publications Board. The following files will be provided, preferably ZIP-compressed: — A single file in format RTS or MS Word named Text_TSCB_ [editor’s last name], containing all the text of the volume, including, in this order, the following parts: cover page, table of contents, presentation, the chapters in the order that they should appear and their corresponding tables. Pages should be consecutively numbered, staring with page 1, which will be the cover page. All text should be written in Times New Roman, pt 12 with 1.5 spaces between lines. The text file cannot contain figures and incrustated objects. — One file for each figure named Figure_[figure number]_ [last name of the first author]. Figures that do not contain text characters can be submitted in standard graphic format (PNG, JPEG, and TIFF); figures that do contain text have to be submitted in an editable format (EPS, PDF, Powerpoint). — A single PDF file named TSCB_[editor’s last name] containing all text plus all figures. Authors and the editor are responsible that in this file, all contents appear correctly printed, in particular special symbols and equations. Each article or, in a monograph, each chapter, including text plus references, tables and figures, should be between fifteen and twenty DIN A4 sheets long, written with the font type and spaces between lines specified above. The maximum length can be surpassed only with prior approval from the Treballs de la SCB Publications Board. Monographs should have a minimum of 10 chapters. The Publications Board will contact specialists who will recommend immediate publication, acceptance after modifications or rejection of the submitted originals. Authors will be notified in due course. If revision is required, authors will receive the corresponding written comments for modifications. Structure of manuscripts. Manuscripts that do not conform to these instructions will be returned to the authors for modifications before their processing. Each chapter or manuscript should have the following structure: — Title, written in capitals and bold case. — Name and last name of author. If there is more than one author, their names will be separated with commas. The corresponding author will be identified with an asterisk placed after their last name.
— Full postal address of all authors. Phone, fax and e-mail address of the corresponding author. — Abstract, maximum two hundred words. — Keywords, maximum five — Text of manuscript. In the case of review articles, a maximum of two (not numbered) subheadings will be accepted. In the case of research articles, the manuscript will include the following sections: Introduction, Materials and Methods, Results, Discussion. Footnotes or underlined text will not be accepted. — Acknowledgments, if appropriate — References (see format below) — Tables. They will be preceded with a brief, descriptive title and will be numbered with Arabian numerals. One table per page — Figure legends Figure. Figures should be of good quality and contrast, taking into account that they can be reduced in size, and that once published they can be at most 14 cm width x 19 cm height. All figures will be in black and white, unless the use of color is essential to understand their meaning. The authors will pay extra costs of publishing color figures. If tables or figures have been previously published elsewhere, the original source must be indicated and it will be the responsibility of authors to deal with possible copyrights. References. All references published and in press cited within the text will have to be included in the reference list arranged in alphabetical order by the last name of the first author. In the text, the name of the authors and the publication year should be used in chronological order. If there are more than two authors, only the name of the first author followed by «et al.» will be used. The following examples represent the appropriate manner in which to cite articles, book chapters and books, respectively. CODINA, C.; VILADOMAT, F.; BASTIDA, J.; LLABRÉS, J. M. (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. MELLADO, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: VICENTE, M.; RENART, J. Ingeniería genética. Madrid: CSIC, 21-30. WOLFFE, A. (1995). Chromatin structure and function. Londres: Academic Press. Galleyproofs and reprints. Once a manuscript has been accepted, the corresponding author will receive the galleyproofs. Galleyproofs will be returned by courier to: Secretaria de la Societat Catalana de Biologia, c/Maria Aurèlia Capmany, 1416, 08001 Barcelona (tel. +34-933 248 584; fax +34-932 701 180; e-mail: scb@iec.cat) within one week. Style corrections cannot be accepted in galleyproofs. Only typographic and technical corrections will be accepted. Once published, authors will receive 20 reprints free of charge.
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA FILIAL DE L’INSTITUT D’ESTUDIS CATALANS
VOLUM 60, 2009
BARCELONA 2009
CONSELL DEPUBLICACIONS REDACCIÓ COMITÈ DE FRANCESC PIFERRER, Qresident, Institut de Ciències del Mar, CSIC, Barcelona RICARD ROCA, Tecretari, vocal de lexicografia, SCB MERCÈ PIQUERAS, Wocal, presidenta de l’ACCC JOAN JOFRE, WPcal, Universitat de Barcelona RAMON BARTRONS, WPcal, Universitat de Barcelona LLUÍS SERRA, Wocal, Universitat de Barcelona CÈLIA MARRASÉ, WPcal, Institut de Ciències del Mar
© dels autors dels articles Editat per la Societat Catalana de Biologia (filial de l’Institut d’Estudis Catalans) Carrer del Carme, 47. 08001 Barcelona Compost per Ricard Roca ricardroca@gmail.com Imprès a Limpergraf, SL Polígon industrial Can Salvatella, carrer de Mogoda, 29-31 Barberà del Vallès ISSN: 0212-3037 Dipòsit Legal: B. 12164-1963
Cent cinquanta anys després de L’origen de les espècies, de Darwin Arcadi Navarro i Carmen Segarra editors
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 60, 2009
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 60, 2009
ÍNDEX Cent cinquanta anys després de L’origen de les espècies, de Darwin Reconstruint Darwin, cent cinquanta anys després . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. Fontdevila A partir d’un inici tan simple. L’origen de la vida: un problema de química amb història . . . . . . . . . . . . . . . . . . . . . . . . . J. Peretó
7
31
Cèl·lules mínimes: evolució i disseny . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. Gil
45
Estructura del genoma . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . T. Marquès-Bonet i L. Armengol
57
Elements transposables, de l’excepció a la norma . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . F. Casals
81
Polimorfisme nucleotídic i canvis adaptatius recents . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. Aguadé
93
Com gens tan semblants generen morfologies tan diverses? El paper clau de la genètica del desenvolupament i la genòmica comparada en la visió darwiniana de l’evolució . . . . . . . . . . . . . . . . . . . . . 103 J. Baguñà L’espècie horitzontal . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . 123 A. Fontdevila Evolució cromosòmica i de la mida genòmica en els animals . . . . . . . . . . . . . . . . . . . . . . 151 E. Petitpierre Domesticació en animals i evolució . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . 169 M. Pérez-Enciso La microevolució en acció: marcadors genètics del canvi climàtic . . . . . . . . . . . . . . . . . . 181 L. Serra
Complint una intuïció de Darwin: genètica humana i llengües . . . . . . . . . . . . . . . . . . . . 195 D. Comas, E. Bosch i F. Calafell Paleogenòmica . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . 205 C. Lalueza-Fox The evolution of cooperation . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . 213 M. Santos i E. Szathmáry Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització . . . . . . . 231 A. Navarro Darwinisme i creacionisme . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . 245 A. Barbadilla
DOI: 10.2436/20.1501.02.74
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 7-30
RECONSTRUINT DARWIN, CENT CINQUANTA ANYS DESPRÉS Antonio Fontdevila Grup de Biologia Evolutiva, Departament de Genètica i Microbiologia, Universitat Autònoma de Barcelona. Adreça per a la correspondència: Antonio Fontdevila. Departament de Genètica i Microbiologia, Universitat Autònoma de Barcelona. Campus de Bellaterra, edifici C. 08193 Bellaterra. Adreça electrònica: antonio.fontdevila@uab.es. RESUM El darwinisme és una idea que trasbalsà l’ordre biològic creacionista, i també el social i el religiós, perquè proposa que les espècies, incloent-hi l’espècie humana, procedeixen d’altres espècies per selecció natural. Aquesta idea perillosa ha estat desafiada repetidament des de diversos fronts. El registre fòssil, a causa de la seva imperfecció i discontinuïtat, ha estat utilitzat pels creacionistes per rebutjar el gradualisme darwinista. Però també alguns paleontòlegs han interpretat aquesta discontinuïtat per negar el model gradual de la selecció natural. L’evolució de la forma, absent en la formulació de la nova síntesi neodarwinista, també ha estat un argument tradicional antidarwinista. Els canvis morfològics s’han considerat moltes vegades producte de mecanismes d’evolució qualitativament diferents del mecanisme selectiu darwinista. Actualment l’enfocament molecular ens ha descobert com es genera la variabilitat morfològica mitjançant xarxes de gens reguladors. Aquesta variabilitat reguladora està subjecta a la selecció natural igual que la variabilitat proteica codificant, i fa innecessaris altres mecanismes evolutius. La moderna evolució molecular ha confirmat també que la complexitat no és irreductible, com els advocats del disseny intel·ligent proposen. El joc entre les mutacions a l’atzar i la selecció natural oportunista (i determinista) té el suport dels estudis actuals de la genòmica comparada i la genètica molecular i del desenvolupament. Totes aquestes proves fan innecessari, i potser absurd, buscar un nou Darwin, com alguns pretenen, encara que sí que demanen una reconstrucció de la nova síntesi. Paraules clau: darwinisme, selecció natural, registre fòssil, variabilitat, gradualisme.
A. Fontdevila
RECONSTRUCTING DARWIN 150 YEARS AFTER SUMMARY Darwinism is an idea that disrupted the creationist biological order, as well as the social and religious ones, because it proposes that species, humans included, derive from each other by natural selection. This dangerous idea has been challenged from different sides. Fossil record, due to its discontinuity and imperfection, has been referred to by creationists to oppose gradual darwinism. Some paleontologists have also interpreted this discontinuity to negate the gradual model of natural selection. The evolution of form, absent in the neodarwinian synthesis, has been a traditional stronghold argument against darwinism. Morphological changes have been often explained as the outcome of evolutionary mechanisms different from darwinian selection. Current molecular approaches have unveiled how morphological variation is enacted by gene regulatory networks. This regulatory variability is the raw material for natural selection in the same way as protein-coding variability, making other mechanisms of evolution unnecesary. Molecular evolution has proved also that complexity is not irreducible, as advocated by the defenders of intelligent design. The darwinian interplay between random mutations and oportunistic natural selection (a deterministic mechanism) is bolstered by comparative genomics and molecular and developmental genetics. All this evidence makes the finding of a new Darwin unnecesary, if not preposterous, as some have proposed, although it may ask for a reconstruction of the new synthesis. Key words: Darwinism, natural selection, fossil record, variability, gradualism. I am almost convinced (quite contrary to opinion I started with) that species are not (it is like confessing a murder) immutable. (Carta de Darwin a Joseph Hooker, 11 de gener, 1844.) LA PERILLOSA IDEA DE DARWIN Charles Robert Darwin és el «culpable» de promoure un dels daltabaixos més espectaculars en la nostra concepció tradicional del paper que els humans tenim a la natura. Nascut el 12 de febrer de 1809, ara fa dos-cents anys, en un món guiat per la narrativa històrica de la Bíblia, va gosar contradir la idea de la creació independent dels éssers vius, els humans inclosos, i va proposar que la complexa biodiversitat actu-
al és el resultat d’un procés de transformació gradual a partir de formes de vida més senzilles. Aquest procés, que ara anomenem evolució biològica, ja havia estat insinuat abans per alguns naturalistes, però la genialitat de Darwin el va portar a concebre un mecanisme explicatiu d’aquesta evolució, que durant els darrers cent cinquanta anys ha ocupat el centre de totes les ciències de la vida. La força explicativa d’aquest mecanisme, anomenat selecció natural, és tan gran que ha traspassat també a altres ciències humanes com la sociologia i l’economia. Fins i tot les lleis de la física, que s’ocupen de partícules elementals d’una naturalesa molt diferent de les unitats de l’evolució biològica, podrien haver evolucionat per selecció natural, segons alguns físics relativistes (Smolin, 2007).
Reconstruint Darwin, cent cinquanta anys després
Darwin no va ser aliè a la força revolucionària de la selecció natural. És per això que durant més de dues dècades, des que va concebre aquesta idea poc després de tornar del viatge del Beagle a finals de 1836, Darwin la va mantenir en secret. La por al rebuig i a l’animositat envers la hipòtesi de l’evolució per selecció natural és ben palesa quan el mateix pare de Darwin li aconsella que no en parli ni amb la seva dona Emma. Les profundes conviccions religioses de l’època no podien acceptar que els éssers vius no s’havien mantingut immutables des de la seva creació independent per part d’un creador omnipotent. Aquesta idea creacionista, encara molt arrelada en la nostra societat occidental (vegeu la figura1), era el fonament d’un estatus social victorià en què cada ésser viu ocupa un lloc predeterminat en l’escala de la natura (scala naturae) sense cap possibilitat de transvasament entre esglaons. Per descomptat que l’espècie humana ocupa un esglaó per damunt de les altres espècies, superat només pels àngels, que la desvincula de qualsevol lligam amb la resta dels éssers vius. Però l’argument de la scala naturae, en la seva interpretació més extrema, no solament donava suport a la nostra independència sobre qualsevol altra espècie, i òbviament la nostra superioritat, sinó que també servia de justificació per a una societat estructurada en races i classes socials des del naixement. El darwinisme, com es coneix l’evolució per selecció natural, va desmuntar l’escala de la natura, i la va substituir per la descendència amb modificació (l’arbre de la vida). Era, per tant, una idea perillosa. Darwin era plenament conscient d’aquest perill. Per això, quan el 1844 escriu al seu amic, el botànic Joseph Hooker, sobre els seus dubtes de la immutabilitat de les espècies, se sent com un criminal que confessa el seu crim. És més, el crim ultrapassava l’enderrocament de l’ordre social del qual
parlàvem abans, i trastocava els fonaments mateixos de la transcendència humana. Sembla que el patiment més gran d’Emma en conèixer la idea del seu marit no era el fet de l’evolució per se, sinó que no podrien estar junts durant tota una eternitat. Si nosaltres no som una espècie apart, si no hi ha un hiatus profund i essencial entre els humans i els altres éssers vius, el sentit transcendent de la nostra existència entra en una crisi metafísica profunda, com ha sabut explicar magistralment Daniel Dennett (1995). I possiblement trontollen els fonaments de la religió també, com pensen alguns evolucionistes, com Dawkins (2006). I think La doble perillositat de la teoria darwinista, concretada en les implicacions socials i religioses, no era l’única raó del silenci de Darwin. L’any 1844, el mateix any de la carta a Hooker, Robert Chambers va publicar un escrit anònim titulat Els vestigis de la història natural de la creació en defensa de l’evolució, que va aixecar tot un seguit de violents atacs verbals. Els arguments de Chambers estaven plens de punts febles fàcilment atacables i no tenien la consistència suficient per donar suport a la hipòtesi evolutiva, i el mateix Darwin se’n va adonar. Des d’aleshores Darwin va decidir que ell no cauria en el mateix error i que no publicaria res fins que els seus arguments no estiguessin fermament provats amb observacions i raonaments difícilment rebatibles. Aquesta decisió li va costar quasi dues dècades de silenci, malgrat que la lectura dels seus quaderns, especialment el d, una síntesi dels quals es pot veure en el seu assaig de 1842, expandit després en l’esbós (sketch) de 1844, fan pensar a molts estudiosos (Eldredge, 2005, p. 127) que Darwin havia arribat a «la seva teoria» poc després
10 A. Fontdevila
del seu viatge del Beagle. El famós esquema del seu arbre evolutiu a la pàgina 36 del quadern b que comença per «I think» data de 1837 (vegeu la figura 2). La història de la gestació i maduració de la teoria darwinista és un exemple admirable de documentació, meticulositat, rigor i modèstia científica per a tothom que vulgui dedicar-se a la ciència. La descripció d’aquest procés cau fora del motiu d’aquest assaig, però jo recomanaria una lectura atenta de l’obra magna L’origen de les espè-
cies a tothom que vulgui copsar, i discutir, els fonaments «perillosos» del darwinisme. Aquesta recomanació està motivada en gran part perquè ja fa temps que sovint surten veus sensacionalistes que asseguren la crisi del darwinisme i la necessitat de substituir-lo per una altra teoria evolutiva. Alguns, aprofitant el moment postmodern, parlen de «deconstruir» Darwin (Sampedro, 2002). Aquest enrenou mediàtic genera preocupació en els intel·lectuals interessats en l’evolució i, en general, confusió en
Islàndia (500) Dinamarca (1.013) Suècia (1.023) França (1.021) Japó (2.146) Regne Unit (1.808) Noruega (976) Bèlgica (1.024) Espanya (1.035) Alemanya (1.507) Itàlia (1.006) Països Baixos (1.005) Hongria (1.000) Luxemburg (518) Irlanda (1.009) Eslovènia (1.061) Finlàndia (1.006) República Txeca (1.037) Estònia (1.000) Portugal (1.009) Malta (500) Suïssa (999) República Eslovaca (1.241) Polònia (999) Austria (1 034) Croàcia (1.000) Romania (1.005) Grècia (1.000) Bulgària (1009) Lituània (1.003) Letònia (1.034) Xipre (505) Estats Units (1.484) Turquia (1.005)
0
20
40 60 80 Resposta Veritat
No segurs
100 Fals
Acceptació pública de l’evolució en 34 països. 2005 Figura 1. Resultats de les respostes, per països, a la pregunta: Creu vostè que els éssers humans actuals procedeixen d’espècies animals més antigues? (entre parèntesi, el nombre d’individus enquestats) (Miller et al., 2005).
Reconstruint Darwin, cent cinquanta anys després 11
el ciutadà. Al llarg d’aquest capítol introductori tractaré de fer un repàs resumit sobre els punts més importants que històricament han tractat de desafiar la teoria de la selecció natural, analitzant-los sota la llum dels coneixements actuals, principalment de la genòmica comparada i la genètica del desenvolupament. Actualment també s’ha posat de moda substituir el creacionisme bíblic, ja del tot insostenible, per un creacionisme deista basat en el suposat disseny intel·ligent de les estructures biològiques. En aquestes pàgines explicaré com el fet evolutiu ens demostra també la fal·làcia d’aquesta intel·ligència.
ALGUNS REPTES HISTÒRICS DEL DARWINISME Des la formulació per part de Darwin, l’evolució per selecció natural ha estat de safiada per diferents fronts (vegeu Moreno, 2008, per a una revisió exhaustiva). El mateix Darwin ja va preveure aquestes objeccions des de la primera edició de L’origen (capítol vi, «Dificultats de la teoria») i va afegir-hi un capítol (vii, «Objeccions diverses a la teoria de la selecció natural») en la sisena i darrera edició per acabar d’aclarir totes les crítiques. Moltes d’aquestes objeccions a les quals ja s’enfrontà Darwin han anat ressorgint al llarg d’aquests últims cent cinquanta anys, si més no sota diferents aparences i denominacions. El puntuacionisme de les pedres del dimoni
Figura 2. Esquema de l’arbre de la vida (el primer de la història) dibuixat per Darwin a la pagina 36 del quadern b de l’any 1837 (http://darwin-online.org.uk/content/ frameset?itemID=CUL-DAR121.-&viewtype=side&page seq=38), en el qual s’assenyala l’espècie ancestral i les espècies extingides i supervivents (marcades amb un traç transversal a l’àpex).
El registre fòssil és una de les proves més aclaparadores de l’evolució de la vida en aquest planeta. Tant és així que quan els fòssils van ser descoberts i popularitzats a gran escala a partir del segle xviii, els dipositaris del saber il·lustrat de l’època sobre la cronologia i la història de la Terra, basat en la Bíblia, es van sentir molt contrariats. L’arquebisbe Ussher va publicar la Cronologia sagrada, un exemple d’obra d’inspiració bíblica que mostra la «saviesa» de l’època, i va datar la creació de l’univers l’any 4004 aC. Però la presència de fòssils en llocs molt allunyats del seu hàbitat natural, per exemple organismes marins a grans altituds, demostrava que la Terra havia passat per grans canvis geològics profunds que necessitaven molt més temps del que els càlculs bíblics indicaven. Tots sabem que l’edat de la Terra, estimada mitjançant tècniques físiques molt sofisticades, és d’uns 4.500 milions d’anys, una
12 A. Fontdevila
xifra molt més gran que qualsevol càlcul bíblic. Però els fòssils no solament desmentien les datacions bíbliques; també entraven en contradicció amb la creació independent dels éssers vius i la seva manca de canvis des de la creació. El fixisme de les espècies, com es coneix aquesta hipòtesi, era poc probable perquè moltes espècies actuals eren diferents però s’assemblaven a espècies fòssils, la qual cosa suggeria que havien evolucionat a partir d’aquestes mitjançant canvis morfològics. El mateix Darwin va enfrontar-se amb aquest fet quan va excavar restes fòssils de Glyptodon a l’Amèrica del Sud, un organisme del plistocè avantpassat de l’armadillo actual. Però no tots els fòssils tenien descendents actuals: molts presentaven una morfologia molt diferent a qualsevol espècie viva coneguda i l’explicació més lògica va ser que eren restes d’organismes extingits. L’extinció era una prova que les espècies no havien estat creades perfectes, és a dir, totalment adaptades al medi, la qual cosa era inacceptable per als creacionistes fixistes com John Ray, autor de La saviesa de Déu manifestada en l’obra de la creació, un text molt influent del segle xvii en el qual argumentava sobre la perfecció adaptativa del disseny estructural dels éssers vius com a prova de l’existència d’un dissenyador perfecte. La dificultat teològica d’acceptar l’extinció com una realitat natural va trastocar els fonaments interpretatius de la diversitat natural fins a tal punt que es va suggerir que calia explorar el nostre planeta més exhaustivament perquè el més probable era que es trobessin exemplars vius de tots els fòssils en regions llunyanes mai visitades. No cal dir que aquests representants vius de dinosaures, mastodonts o megateris mai no s’han trobat. Els fòssils eren, per tant, una evidència massa aclaparadora que la creació bíblica no servia per explicar l’origen i el desenvo-
lupament de la vida al planeta i, per tant, es van qualificar de «pedres del dimoni». És a dir, el maligne havia donat forma a les roques com si fossin formes orgàniques per confondre els creients i fer que perdessin la seva fe en el veritable coneixement bíblic de la història de la Terra. La proposta de Darwin que les espècies descendeixen unes d’altres per modificació gradual mitjançant la selecció natural resolia el problema de la cronologia ordenada dels fòssils al llarg de grans períodes de temps, i també el fet que molts llinatges evolutius s’haguessin extingit. Les espècies no eren creacions perfectes, sinó el resultat d’un procés oportunista d’adaptació per selecció natural, i podien extingir-se en enfrontar-se a reptes ambientals futurs. Més endavant tornarem a parlar d’aquest caràcter oportunista de la selecció natural. Però ara cal remarcar que l’observació del registre fòssil va descobrir immediatament que les sèries estratigràfiques no mostraven la continuïtat de formes que el gradualisme exigia aparentment. Faltaven moltes formes intermèdies i el registre era discontinu. Darwin es va enfrontar de cara amb aquest problema, i dedicà tot un capítol de L’origen a discutir la imperfecció dels registres geològics. La justificació d’aquesta imperfecció està exhaustivament documentada per part de Darwin basant-se en les dificultats de fossilització —no hem d’oblidar que Darwin tenia una formació geològica prèvia a la seva formació biològica. Però aquí ens interessen molt més les seves idees sobre l’especiació i com aquestes justifiquen també la discontinuïtat del registre fòssil. Per a Darwin la manca de formes intermèdies és, en molts casos, el resultat que les noves espècies es produeixen a partir de varietats locals, de distribució molt reduïda, en què la probabilitat de fossilització és normalment baixa. Només quan aquestes varietats s’hagin modificat prou perquè
Reconstruint Darwin, cent cinquanta anys després 13
la seva aptitud els permeti ocupar amb èxit noves zones de vida, es dispersaran. Si envaeixen àrees ocupades per l’espècie originària i en aquests llocs es fossilitzen, les noves formes «apareixeran com creades allà de sobte, i seran simplement classificades com a noves espècies», segons ens diu Darwin (L’origen, cap. xiv, 1a ed. 1859, p. 465). Ben segur que aquest escenari biogeogràfic no és aliè al lector especialitzat. Ernst Mayr (1942), un dels pares de la nova síntesi evolutiva, va rescatar aquest model biogeogràfic en què les espècies es formen en aïllats fora de la distribució normal de l’espècie i, com és sabut, el va anomenar especiació peripàtrica. Encara que les discontinuïtats del registre fòssil han estat superades en molts llinatges, com en el dels hominins, pels nous descobriments fòssils dels paleontòlegs en les darreres dècades, en molts casos el registre fòssil es manté incomplet. Aprofitant el model peripàtric, Eldredge i Gould (1972) van proposar que les espècies no són el resultat d’una modificació gradual, sinó que sorgeixen de sobte i es mantenen inalterades al llarg de la seva existència. Aquesta hipòtesi, anomenada equilibri puntuat, veu l’evolució com un conjunt d’episodis puntuals d’especiació, en els quals es generen tots el canvis, que separen (puntuen) llargs períodes de constància morfològica (estasi evolutiva). Aquí no estem parlant de diferents taxes d’evolució, quelcom ja acceptat per Darwin i molts paleontòlegs com Simpson. La hipòtesi puntuacionista nega el canvi gradual evolutiu de la descendència amb modificació, tal i com Darwin havia proposat. És per això que segons els seus autors aquesta hipòtesi és revolucionària. Han passat més de trenta anys des la formulació de la hipòtesi dels equilibris puntuats i això ens dóna una perspectiva per analitzar la seva realitat. Si ens centrem en l’especiació com un procés, és clar que la se-
lecció natural hi té molt a dir (vegeu l’altre article de Fontdevila en aquest mateix volum). A mesura que els estudis genòmics i ecològics actuals generen noves dades, el paper de la selecció natural en la divergència i el manteniment de les espècies està sent revalorat, la qual cosa ens apropa cada vegada més a les idees darwinistes. Les revolucions genètiques proposades per Mayr (1963, p. 533) i els partidaris de les diferents variants de l’especiació peripàtrica no escapen als mecanismes de la genètica de poblacions convencional, entre els quals la selecció natural és primordial, encara que no l’únic. Els experiments que han sotmès organismes de laboratori a colls d’ampolla poblacional per estudiar l’efecte de la reducció de la mida de la població (efecte fundador) no demostren clarament que es generin canvis genètics profunds. Almenys, les dades experimentals i poblacionals demostren que els canvis incideixen bàsicament en l’aïllament sexual i són el resultat probablement de la selecció sexual (vegeu Fontdevila i Moya, 2003, p. 183-187). És veritat que l’aïllament geogràfic facilita moltes vegades la divergència, però no és un requisit indispensable per a l’especiació. Per contra, els canvis provocats per l’ambient, ja sigui per selecció o elecció d’hàbitat, estan molt documentats i demostren el paper de la selecció ecològica en la divergència (vegeu l’altre article de Fontdevila en aquest mateix volum). En resum, encara que és probable que moltes vegades els períodes d’especiació siguin ràpids, com ho demostren per exemple les radiacions adaptatives dels cíclids o els salts d’hoste d’insectes monòfags, es tracta de canvis en taxes d’evolució adaptativa i no de processos nous aliens a l’efecte combinat de la selecció i la deriva genètica. L’estasi morfològica, l’altre pilar del puntuacionisme, es pot explicar per molts mecanismes de la biologia de poblacions
14 A. Fontdevila
coneguts des de fa molt temps. La selecció estabilitzadora, la pleiotropia antagònica o la plasticitat fenotípica permeten entendre per què la morfologia no canvia malgrat que la selecció natural estigui actuant. La deducció que és impossible pensar que les espècies és mantinguin inalterades en grans estrats geològics perquè l’ambient no es pot mantenir constant en llargs períodes de temps és desconèixer com funciona l’evolució per selecció natural. Futuyma (2005, p. 402) argumenta tot just el contrari. Quan hi ha molts canvis ambientals inconsistents en el temps, la selecció genera canvis morfològics fluctuants de curta periodicitat que no són detectables en el registre fòssil. Per contra, només els canvis ambientals que generen hàbitats que es mantenen constants són els que poden generar canvis a llarg termini. Finalment, l’ambient pot ser també puntuacionista, com sembla el cas de molts canvis del nivell de l’aigua als llacs africans, com el Turkana, on s’han descrit estasis i puntuacions morfològiques de mol·luscs fòssils. Resumint, el registre fòssil ha estat, i segueix sent, un dels baluards de la teoria evolutiva. Ningú no pot defensar ja que els fòssils són pedres del dimoni. Els fòssils ens ajuden a reconstruir la història de la vida al planeta i sense aquests la nostra comprensió de l’evolució seria molt menys precisa. Però el registre fòssil té les seves limitacions. És impossible deduir els mecanismes evolutius solament a partir dels patrons paleontològics de la morfologia, i els estudis de les poblacions actuals (neontològics) són necessaris per esbrinar aquests mecanismes. El patró de la discontinuïtat del registre fòssil es pot explicar perfectament amb els mecanismes de la biologia de poblacions, com hem vist més amunt. El patró del puntuacionisme és important, però es pot interpretar perfectament dins d’una òptica darwinista. Levinton (2001) ha criti-
cat el punt de vista que tot el canvi evolutiu es produeix en períodes puntuals d’especiació perquè el canvi gradual de velocitat variable mitjançant mecanismes de la moderna teoria evolutiva pot explicar els exemples puntuacionistes. D’altra banda, el registre fòssil mostra també molts exemples de canvi gradual intraespecífics i interespecífics que normalment són obviats pels puntuacionistes. Fa la impressió que Gould, El dredge i altres puntuacionistes han intentat crear un fals enemic: el darwinista que solament creu en la velocitat constant del canvi evolutiu. A mesura que els estudis moleculars del genoma i del desenvolupament ens aporten més dades veiem que les regles del joc darwinista són vàlides tant a escala intraespecífica com interespecífica. De tots els nous coneixements, els de l’evolució de la forma, dels quals ni Darwin ni els pares de la síntesi van poder dir gaire, són els que possiblement estan permetent amb més fermesa que el darwinisme segueixi més viu que mai. Però això és una altra història, de la qual parlarem més endavant. L’explosió del càmbric La dificultat de trobar homologies morfològiques entre els diferents tipus corporals ha estat tradicionalment un argument antidarwinista. Establir homologies és una tasca feixuga per dos motius. En primer lloc, si el temps evolutiu és llarg les estructures s’han modificat tant que és difícil reconèixer el seu origen comú. Moltes estructures es detecten com a homòlogues observant els estadis embrionaris abans que les formes adultes. En segon lloc, els canvis no són solament estructurals, sinó que les estructures homòlogues derivades poden tenir funcions molt diferents de les originals. Això es pot observar ja en les homologies de les extremitats dels vertebrats que ser-
Reconstruint Darwin, cent cinquanta anys després 15
veixen per a diverses formes de locomoció (marxa terrestre, vol, natació), però l’exemple de la transformació del ossos de la mandíbula dels rèptils en els ossets de l’oïda mitjana dels mamífers és força il·lustratiu. Aquest procés d’apropiació d’una estructura ancestral per, mitjançant modificació, canviar la seva funció, és molt corrent tant a escala morfològica com molecular, i ha estat denominat cooptació, i la nova estructura, exaptació. El concepte d’exaptació substitueix el de preadaptació, i corregeix les connotacions teleològiques d’aquest últim, que podrien induir a pensar que un caràcter podria ser seleccionat en funció de la seva futura utilitat. A escala genètica els problemes podrien ser anàlegs. El mateix Ernst Mayr (1963, p. 609), un dels arquitectes de la teoria sintètica, va escriure que «la recerca de gens homòlegs és completament inútil excepte en organismes estretament emparentats». Òbviament, la interpretació evolutiva és que els enormes períodes de temps han modificat tant l’estructura dels gens que és pràcticament impossible reconèixer el seu origen comú. Però la interpretació antievolucionista d’aquestes dificultats és que no hi ha homologies perquè no existeix un ancestre comú. El registre fòssil del càmbric, un període geològic que està datat entre fa 543 i 505 milions d’anys, suggereix l’aparició ràpida (geològicament parlant), en menys de vint milions d’anys, d’una gran varietat de plans corporals animals o fílums, que inclouen no solament els actuals sinó també d’altres desapareguts. Aquesta explosió, com ha estat anomenada tradicionalment, ha donat peu als antievolucionistes a negar el mecanisme evolutiu gradual darwinista en l’origen dels grans fílums. El problema és antic i prové de la dificultat històrica d’establir relacions filogenètiques entre els fílums. Els grans anatomis-
tes del segle xix, tots creacionistes, es van esforçar a establir aquestes relacions. El geni de Georges Cuvier, professor del Museu d’Història Natural de París i fundador de la moderna anatomia comparada, va arribar a reduir tota la biodiversitat animal a quatre plans corporals o bauplans: Vertebrata (vertebrats), Mollusca (mol·luscs), Articulata (artròpodes) i Radiata (animals amb simetria radiada), entre els quals, segons ell, era impossible passar mitjançant canvis evolutius, la qual cosa s’oposava a l’evolució gradual anatòmica. Aquesta discontinuïtat insalvable entre els fílums ha estat explotada recurrentment pels detractors de l’evolució darwinista. Malgrat que la idea d’un sol pla corporal ancestral va arribar a ser defensada per Geoffrey Saint-Hilaire, un altre anatomista cèlebre, Cuvier la va dinamitar en una famosa sessió de l’Acadèmia de Ciències. Val a dir que aquestes homologies eren interpretades com a variacions de tipus ancestrals fixos (arquetips) i mai com a producte de l’evolució. La prova definitiva de la unitat global de tipus ha hagut d’esperar els estudis moleculars recents de la biologia del desenvolupament (vegeu l’article de Baguñà en aquest volum). També la datació molecular, de la qual parlaré més endavant, indica que les estructures moleculars típiques dels fílums tindrien una antiguitat molt més enllà del càmbric. Aquesta polèmica antiga ha estat ressuscitada en part, encara que en una versió evolutiva però antidarwinista, per Stephen Jay Gould, que la va popularitzar en el seu llibre Wonderful life (1993). Des del seu origen fins als inicis del càmbric, un període de més de 3.000 milions d’anys, la vida ha estat representada en el nostre planeta per procariotes i algues eucariotes unicel·lulars. Els primers vestigis animals multicel·lulars estan datats de fa uns 640 milions d’anys i des d’aleshores es coneixen dues grans radiacions successives: la primera fa uns 580
16 A. Fontdevila
milions d’anys (el precambrià), anomenada de Ediacara, pel lloc d’Austràlia on es van trobar els primers d’aquests fòssils; la segona està registrada en roques d’una antiguitat entre 525 i 505 milions d’anys per tot el món, i és l’anomenada explosió del càmbric. La fauna d’Ediacara consta de formes centimètriques tubulars, ramificades i radials, que en molts casos fan recordar les meduses (fílum cnidaris), però que moltes vegades no es poden relacionar amb cap fílum actual. Sigui com sigui, aquesta fauna, que es va extingir fa uns 540 milions d’anys, és de difícil caracterització segons els patrons corporals actuals, però demostra que en aquesta època existien ja avantpassats dels animals del càmbric. Recentment, en una reunió de la Societat Geològica Americana, Loren Babcock (2008) ha presentat proves de les petjades d’un animal amb potes d’Ediacara, que podia ser un artròpode similar a un centpeus. Un indici més que la vida complexa podria haver estat ja present abans del càmbric. L’explosió del càmbric està perfectament documentada en el jaciment del Burguess Shale, descobert pel paleontòleg Charles Scott en una expedició a la British Columbia (Canadà) el 1909. Aquest jaciment conté unes cent quaranta espècies animals assignades a més de deu fílums d’una antiguitat de fa uns 505 milions d’anys. Actualment, altres jaciments més antics com el de Chegjiang (Xina) demostren que la vida del càmbric estava generalitzada al planeta i que les estructures corporals estaven ja molt ben desenvolupades. En particular, formes complexes com els artròpodes i els lobopodis ja s’havien diversificat àmpliament. I tot això s’havia produït en menys de vint milions d’anys! És més, des d’aleshores no s’han originat fílums animals nous. Això, juntament amb el fet que alguns autors, com Gould, pensen que molts fílums del càmbric s’han extingit, ha alimentat la idea que
la història de la vida no mostra un augment progressiu de diversificació sinó tot el contrari, una disminució de l’abundant disparitat (un terme que descriu la diversificació en plans corporals) que va existir en el càmbric (vegeu la figura 3). El desafiament que representen aquests fets per al darwinisme és evident. En primer lloc, la sobtada aparició dels plans corporals explicaria les dificultats de trobar homologies entre fílums i donaria suport al fet que altres «forces» independents de la selecció natural haguessin dirigit aquesta explosió del càmbric. Aquestes forces no selectives no han estat mai ben definides, però, en la seva forma més documentada, fan referència a causes internes, com la invenció de bateries de gens constructors de la forma. Aquest és el camp de la genètica del desenvolupament i l’embriologia, dues disciplines que han aclarit en els darrers vint anys molts aspectes de la biologia evolutiva del desenvolupament (abreujadament, evo-devo). En segon lloc, la pregunta sobre per què la selecció natural no ha estat capaç de fer que nous plans corporals evolucionessin des del càmbric és també un altre desafiament al darwinisme. Ambdós desafiaments han estat motiu d’especulacions en les darreres dècades amb solucions internalistes, basades sobretot en les limitacions del desenvolupament, però també amb solucions externalistes fent servir els coneixements que hem anat assolint sobre la història dels canvis climàtics, geogràfics i ecològics del planeta. Moltes d’aquestes especulacions s’estan aclarint amb els nous estudis de l’evo-devo i també de l’ecologia evolutiva. L’evolució de la forma El 1947, una reunió a Princeton (EUA) per discutir l’estat de la teoria de l’evolució va
Reconstruint Darwin, cent cinquanta anys després 17
servir per cristal·litzar el que després s’anomenaria la teoria sintètica moderna de l’evolució (o nova síntesi, abreujadament). Com és ben sabut, la teoria sintètica, recapitulada en el llibre de Julian Huxley Evolució: la síntesi moderna (1942), postula que l’evolució pot explicar-se mitjançant l’acció de la selecció natural sobre petits canvis genètics en les poblacions (microevolució) i que l’acció continuada d’aquest mateix mecanisme al llarg del temps explica els grans canvis observats en els nivells taxonòmics superiors (macroevolució). La genètica de poblacions va ser incorporada al darwinisme en aquesta síntesi, cosa impossible en el darwinisme original a causa de la mancança d’una teoria genètica en temps de Darwin. Però la nova síntesi no va poder incorporar
Figura 3. a) Arbre de la vida segons Darwin i b) arbre de la vida segons Gould. S’observa que la disparitat disminueix després del càmbric (nivell de la línia discontínua).
una teoria genètica del desenvolupament perquè no existia. Per aquesta raó, molts evolucionistes com Sean Carroll (2005), un genètic del desenvolupament, mantenen que malgrat la seva modernitat i síntesi, aquesta teoria era incompleta. La nova síntesi no va poder explicar l’evolució de la forma i va tractar el desenvolupament (és a dir, l’embriologia), com una «caixa negra» que transformava la informació genètica en les estructures corporals dels organismes mitjançant l’acció ordenada de gens, la naturalesa i el funcionament dels quals eren pràcticament desconeguts. El descobriment d’aquests gens és antic. El 1915 un genètic, anomenat Calvin Bridges, va obtenir una mosca mutant que tenia dos parells d’ales, el segon parell en comptes dels halteris. Era el mutant Bithorax. A partir d’aleshores, altres mutants com aquest, en què una part del cos es transforma en una altra, es van anar trobant en Drosophila melanogaster, la mosca model de la genètica, que era l’organisme de treball d’un grup de genètics il·lustres dirigits per T. H. Morgan a la universitat de Columbia de Nova York. Un altre d’aquests mutants s’anomenà Antennapedia, perquè té potes al cap en lloc de les antenes. De fet, ja William Bateson havia descrit el 1894 un seguit de monstres d’aquest tipus en molts organismes com borinots, crancs, papallones, granotes i d’altres. També hi ha «monstres» humans, com el cas d’individus amb costelles extra, un o dos parells de mugrons addicionals, dits supernumeraris i altres de més esfereïdors, com la presència d’un sol ull central (ciclòpia) o d’un parell extra de petites orelles. Totes aquestes anormalitats, en què una part del cos adquireix la forma d’una altra part, les va anomenar homeòtiques. La importància que aquests mutants homeòtics tenien per a Bateson era que demostraven, segons ell, que l’evolució morfològica podia produir-se a salts i no segons el
18 A. Fontdevila
gradualisme advocat per Darwin. Els canvis saltacionals o macromutacions eren l’alternativa a les micromutacions afavorides pels evolucionistes darwinistes, fruit dels estudis impecables fets en les poblacions. L’argument saltacionista és que si bé les micromutacions són el fonament de la variabilitat sobre la qual actua la selecció natural en els canvis evolutius menors, en les poblacions i en l’especiació, els canvis majors responsables de l’origen dels grans tipus morfològics serien el resultat de les macromutacions. No cal dir que la majoria de genètics han dubtat sempre d’aquesta dicotomia (vegeu, però, Goldschmidt, 1940). Els estudis recents sobre els gens homeòtics els han donat la raó. Els mutants homeòtics obtinguts pels investigadors de les mosques són un exemple, però no l’únic, de com les lleis de la genètica i de l’evolució de les mosques i d’altres organismes «inferiors» són extrapolables als altres éssers vius. De fet, dos investigadors il·lustres, Jacob i Monod (1961), mentre estudiaven la regulació genètica del bacteri Escherichia coli van iniciar el camí d’aquesta extrapolació. Qui hagi llegit el magnífic llibre Le hasard et la nécessité (L’atzar i la necessitat) sap de què estic parlant i pot entendre la famosa frase de Monod (1971) «El que és cert per a E. coli ho és també per a l’elefant». El fet és que quan les tècniques de la biologia molecular van estar disponibles, els vuit gens responsables dels mutants homeòtics de Drosophila van ser clonats i es va veure que cartografiaven junts el tercer cromosoma de la mosca formant dos grups: els complexos Bithorax (tres gens) i Antennapedia (cinc gens). El més característic d’aquests gens és una seqüència d’uns cent vuitanta nucleòtids (homeobox) molt semblant en tots que codifica un domini proteic (una part de la proteïna total codificada) de seixanta aminoàcids (homeodomini). Quan es va comparar aquest homeodomini proteic amb el
d’altres proteïnes que, enllaçant-se a certes regions del DNA, regulaven l’expressió dels gens de bacteris i llevats, la semblança va ser total. Els gens homeòtics eren, per tant, sospitosos de codificar proteïnes reguladores dels interruptors genètics del desenvolupament animal. Però el més important, evolutivament parlant, era la gran homologia entre gens d’organismes tan allunyats com Drosophila i els llevats. Aquesta homologia es va confirmar seqüenciant altres organismes. Per exemple, dels seixanta aminoàcids de l’homeodomini, cinquanta-nou eren idèntics entre ratolins i Drosophila, dos organismes els llinatges dels quals s’havien separat abans de la famosa explosió del Càmbric de la qual ja hem parlat, és a dir, fa més de 500 milions d’anys. Ningú, ni el mateix Mayr, hauria sospitat que plans corporals tan diferents com el d’una mosca (un artròpode) i el d’un ratolí (un cordat) estan construïts pels mateixos gens. La unitat del tipus únic semblava comprovada. Els gens Hox, que és com s’anomenen aquests gens amb homeoboxes, no són els únics que intervenen en la construcció del cos; de fet, ocupen una posició intermèdia en la cascada de gens del desenvolupament. En Drosophila n’hi ha uns quants centenars i nosaltres potser en tenim tres mil. Molts d’aquests gens estudiats presenten grans homologies i s’expressen en les mateixes estructures (ulls, potes, ales, etc.) en tots els organismes. La manera d’actuar d’aquests gens és semblant a la d’un GPS, segons Carroll (2005). De la mateixa manera que un localitzador GPS integra mesures diverses per situar el lloc, el DNA interruptor situat al costat dels gens, normalment en posició 5´, conté seqüències (signatures) que s’enllacen amb les proteïnes reguladores codificades per altres gens i la combinació específica d’aquests inputs determina la posició del cos on ha d’expressar-se el gen per construir un ull, una pota o un cor. El poder
Reconstruint Darwin, cent cinquanta anys després 19
de la combinatòria és enorme, ja que si pensem que un animal té unes cinc-centes proteïnes d’enllaç, hi ha 5002 = 250.000 parells de combinacions, 5003 = 125.000.000 combinacions triples i més de seixanta mil milions de combinacions quàdruples possibles per situar el lloc d’actuació d’un gen. L’entramat de relacions entre els gens promogudes per aquesta sèrie d’interruptors gènics és complexa, però, en tot cas, els estudis d’evo-devo (i de filogènia molecular) ens demostren que existeix una unitat de tipus que es pot datar molt més enllà del càmbric, que l’evolució de la forma (la biodiversitat) depèn més de quan i on s’expressen els gens que de les diferències entre aquests i que els canvis evolutius importants són als gens reguladors i a les signatures d’enllaç (els interruptors) més que als gens estructurals. Aquests estudis expliquen també per què el nombre de gens estructurals no està relacionat directament amb la complexitat orgànica i permet entendre per què nosaltres i els ratolins tenim aproximadament el mateix nombre i tipus de gens (uns vint-i-tres mil) malgrat les nostres diferències morfològiques i fisiològiques. L’estructura jeràrquica, reguladora i modular dels gens del desenvolupament possibilita l’aparició de molta variabilitat fenotípica sobre la qual pot actuar la selecció natural. És aquesta variabilitat d’una categoria diferent de la variabilitat proposada pel darwinisme? Sí, en el sentit que és generada en gran part no per canvis dels gens codificants sinó per canvis en les seqüències reguladores (els interruptors), encara que també en gens codificadors (vegeu Hoekstra i Coyne, 2007). No, si pensem que els canvis fenotípics del desenvolupament són del tipus saltacional afavorit per Bateson i tots els saltacionistes posteriors. És impensable que un mutant homeòtic, tal i com apareix en els nostres laboratoris, pugui tenir cap èxit a la natura. La selecció natural ben se-
gur que eliminaria immediatament els fenotips Bithorax. Per contra, l’evo-devo ens explica que encara que els insectes amb dos parells d’ales «siguin el producte de l’evolució de la repressió de la formació de les ales mitjançant les proteïnes Hox mentre actuen al primer segment toràcic i en tots els segments abdominals, aquesta repressió deu haver evolucionat en fases en els diferents grups ancestrals d’insectes, perquè el registre fòssil conté espècies en què la repressió alar va ser solament parcial», tal i com ens explica Carroll (2005, p. 179). En definitiva, l’evolució gradual darwinista entra perfectament dins de les regles arquitectòniques del desenvolupament. LA RECONSTRUCCIÓ DARWINISTA: OPORTUNISME VERSUS DISSENY La majoria de reptes actuals del darwinisme provenen, com hem vist, de «ressuscitar» antics conceptes, que, com les macromutacions, es van formular quan els nostres coneixements biològics i geològics eren molt incomplets. La pregunta és si els nous avenços científics confirmen aquests reptes o més aviat els invaliden. Un altre aspecte que possiblement genera controvèrsia és la manca d’enteniment del procés selectiu. Aquest és un aspecte delicat en el qual resulta molt sorprenent comprovar que tot sovint en les converses sobre evolució amb persones no acadèmiques, però també amb professors i investigadors d’altres especialitats, s’observen alguns malentesos sobre el mecanisme de la selecció natural. Els avenços en el registre fòssil juntament amb el desenvolupament espectacular de la filogènia molecular demostren que els desafiaments paleontològics al darwinisme són cada vegada menys crítics. La discontinuïtat del registre no demostra necessàriament la hipòtesi dels equilibris puntuats,
20 A. Fontdevila
com hem justificat abans. També hem descrit més amunt com les formes complexes ja existien abans del càmbric. Les restes fòssils precambrianes com la fauna d’Ediacara corresponen a organismes complexos però sense parts dures fossilitzables, la qual cosa no és estrany si tenim en compte la gran quantitat d’organismes tous que existeixen actualment. Els estromatòlits, tapets microbians rics en bacteris fotosintètics (cianobacteris), molt abundants des de fa 3.000 milions d’anys, no sembla que hagin estat capaços d’acumular nivells d’oxigen lliure a l’atmosfera comparables als actuals fins fa uns 600 milions d’anys. Però, una vegada es van assolir aquests nivells, hi ha raons fonamentades que l’abundància d’oxigen va permetre que els animals pluricel·lulars (metazous) poguessin adquirir una bioquímica de difusió adequada, que el col·lagen se sintetitzés i fes possible l’adherència cel· lular, i que la secreció calcària dels exosquelets tingués lloc. A partir d’aleshores la fossilització de les parts dures hauria ja estat possible. L’argument que la pobresa del registre precambrià fa que l’explosió dels plans corporals del càmbric sigui un artefacte i que aquests plans ja estaven presents molt abans té en part el suport dels estudis de filogènies moleculars en gens homòlegs ancestrals. Aquestes filogènies utilitzen la datació del rellotge molecular. En general aquests estudis demostren que la separació dels fílums es remunta a períodes molt allunyats del precambrià. Així, els estudis de Wray et al. (1996) i Blair i Hedges (2005) basats en seqüències proteiques troben que la divergència entre fílums data entre fa 800 i 1.200 milions d’anys. Posteriorment alguns estudis han fet correccions per canvis en la taxa molecular d’evolució. En els estudis més conservatius la data d’origen dels fílums s’endarrereix almenys 100 milions d’anys respecte a l’inici del càmbric.
Sigui com sigui, els coneixements dels mecanismes jeràrquics dels gens del desenvolupament ha contribuït també a donar suport al fet que els plans corporals bàsics estaven ja formats molt abans del càmbric. Aquests gens són extremadament semblants en tots els fílums, la qual cosa demostra una homologia molt ancestral. Un exemple d’això són els gens de la formació de l’ull, un caràcter que també s’ha utilitzat tradicionalment per desafiar el paper de la selecció natural en l’evolució dels òrgans complexos. LA REDUCCIÓ DE LA COMPLEXITAT: AHIR I AVUI Els arguments antidarwinistes de l’origen dels òrgans complexos estan basats en dues fal·làcies. La primera afirma que els òrgans complexos i, en general, els organismes, tenen un disseny perfecte. La segona postula que és impossible l’evolució gradual d’un òrgan complex perquè els estadis intermedis serien poc o gens aptes per a la supervivència i, per tant, l’origen de l’òrgan ha de fer-se de cop. No ens entretindrem gaire en l’argument de la perfecció del disseny. És ben sabut que els exemples d’imperfecció de disseny són abundants i van des d’estructures innecessàries, com per exemple les ales inútils dels pingüins i els estruços, les dents rudimentàries de les balenes o el nostre còccix al final de la columna vertebral, fins a estructures molt allunyades de la perfecció com la posició anterior de les fibres nervioses davant de les cèl·lules fotoreceptores de la retina del nostre ull, i no darrere, com un bon disseny hauria aconsellat. És per això que l’ull dels vertebrats s’anomena de retina invertida, a diferència dels ulls de retina normal presents en altres organismes com els cefalòpodes (els pops, per
Reconstruint Darwin, cent cinquanta anys després 21
exemple). No cal dir que la raó d’aquest mal disseny és l’oportunisme històric del funcionament de l’evolució per selecció natural. Ja fa temps que l’argument del disseny perfecte ha estat invalidat com a prova de la necessitat d’un dissenyador perfecte. Dawkins (1986) ha ironitzat dient que en cas d’existir un dissenyador (o rellotger) aquest hauria estat cec. D’altres com Jacob (1982), han dit que hauria estat un llauner en comptes d’un dissenyador. Però el segon argument, l’argument de la complexitat irreductible, com s’anomena en la versió més recent, mereix una reflexió perquè segueix estant a la palestra dels antidarwinistes. Són els defensors del «disseny intel·ligent», una versió actual del creacionisme (vegeu l’article de Barbadilla en aquest mateix volum). Però a més a més, l’origen de la complexitat morfològica, la gran absent de la nova síntesi, constitueix un argument que alguns evolucionistes utilitzen també per negar la selecció natural com a motor de l’evolució adaptativa. L’ull ha estat un dels exemples més utilitzats per negar la descendència amb modificació com a explicació de l’evolució dels òrgans complexos. Des de sempre s’explicava la gran diversitat d’estructures d’ulls com el resultat de múltiples processos evolutius independents, entre quaranta i seixanta-cinc segons Salwini-Plawen i Mayr (1977), en els diferents grups zoològics. La formació repetida dels ulls partint de zero era possible, però era més probable que l’evolució hagués utilitzat estructures antigues d’un o diversos avantpassats senzills comuns a tots els grups per anar construint pas a pas els diferents tipus d’ulls. Aquesta manera global d’evolucionar resoldria millor el segon argument antievolucionista: els passos intermedis són adaptatius perquè representen òrgans molt simples detectors de llum que confereixen aptitud als organismes ancestrals. La demostració d’aquesta unitat de
tipus és un èxit de la genètica del desenvolupament. La història moderna de l’evolució de l’ull comença amb l’estudi del mutant Eyeless de Drosophila per part de l’equip de Walter Gehring (Quiring et al., 1994). Aquest mutant impedeix la formació de l’ull. La seqüència normal del DNA del gen eyeless codifica una proteïna que és extremadament semblant a les codificades pels gens aniridia, en humans, i small eye, en els ratolins. Sorprenentment totes aquestes proteïnes, necessàries per a la formació de l’ull, són la mateixa, que s’anomena Pax-6. L’homologia i l’extrema conservació d’aquests gens es va fer ben palesa quan els investigadors van ser capaços d’activar el gen Pax-6 de ratolí en Drosophila i va induir teixit ocular de mosca. És més, aquesta intercanviabilitat funcional es dóna entre Pax-6 aïllades d’organismes tan diferents com pops, planàries i anèl·lids. L’explicació evolutiva més versemblant és que un avantpassat comú a tots aquests animals ja utilitzava Pax-6 per desenvolupar un tipus d’ull probablement molt primitiu. Aquest ull, semblant al que es troba en algunes larves d’anèl·lids marins, constaria de dues cèl·lules, un fotoreceptor i una cèl·lula pigmentada. Però, a més a més, aquest «ull» conté ja components proteics que, com les opsines, formen part dels ulls més complexos. La complexitat de l’ull és bàsicament el resultat de muntar un gran nombre d’aquestes estructures bicel·lulars en l’espai utilitzant els mateixos tipus de cèl·lules i de gens oculars. No es tracta de derivar uns ulls moderns dels altres. Això faria difícil explicar l’aptitud dels passos intermedis. Per contra, cada llinatge (fílum) animal ha evolucionat a partir d’una estructura comuna mitjançant canvis graduals que han anat millorant la funcionalitat sense perdre l’aptitud en els estadis intermedis. Un exemple d’aquesta evolució gradual es pot observar
22 A. Fontdevila
en els mol·luscs, els ulls dels quals estan re- d’òrgans formen part d’una col·lecció àmpresentats des d’una taca ocular pigmenta- plia de gens d’una «caixa (kit) d’eines genèda, passant per diferents ulls en forma de tiques», en paraules de Carroll (2005), una calze, fins a arribar als ulls amb cristal·lí i gran proporció dels quals són factors de tan complexos com els dels pops (vegeu la transcripció com els gens mestres, però que figura 4). Aquesta evolució gradual a partir inclou també gens que codifiquen proteïnes d’un conjunt de gens mestres comuns molt que actuen com a senyals entre cèl·lules. antics no és patrimoni exclusiu de l’evoluAquests gens són molt conservadors i ció de l’ull. L’evo-devo ens ha demostrat que l’evolució de la complexitat de la forma és els diferents cors, sistemes digestius, mús- el resultat de la combinació de les signaculs, sistemes nerviosos i extremitats ani- tures dels seus interruptors més que dels mals utilitzen també antics gens construc- canvis en les seves zones codificants, com tors comuns. Aquests gensOJOS constructors ja hem indicat abans. Però aquí cal recalDE GASTERÓPODOS
Patella Pleurotomaria Ull en calze
Turbo
Haliotis Ull en agulla
Murex
Nucella Ull amb cristal·lí
Figura 4. Esquemes detallats d’ulls de gasteròpodes ordenats en grau creixent de complexitat: 1) ull en calze obert de Patella; 2) calze més tancat de Pleurotomaria; 3) ull en agulla d’Haliotis; 4) ull tancat de Turbo; 5) ull amb cristal·lí (cr) de Murex, i 6) ull amb cristal·lí de Nucella. En les estructures més primitives (1, 2, 3 i 4) el calze de l’ull es va tancant progressivament, i la seva curvatura interna afavoreix una millor concentració de la llum a les cèl·lules de la retina (r) i una ocupació de la cavitat d’un líquid proteic d’origen cel·lular (pv: proteïna vítria) que protegeix la retina dels danys exteriors. En els ulls més evolucionats (5 i 6) alguns dels fluids de la cavitat s’endureixen amb proteïnes més concentrades i formen una lent convexa (cr: cristal·lí) que permet un enfocament millor de la llum sobre la retina. ep: epiteli; cp: cèl·lules pigmentades; no: nervi òptic; co: còrnia (Salvini-Plawen i Mayr, 1977).
Reconstruint Darwin, cent cinquanta anys després 23
car que la conservació, tal com la innovació d’aquestes xarxes reguladores, no ha de ser aliena a la selecció natural gradualista. La diferència respecte de la interpretació de la nova síntesi, en què els canvis eren atribuïts a mutacions en gens codificadors, està en el fet que els canvis innovadors es generen en gran part mitjançant mutacions en les seqüències de DNA de les signatures dels interruptors i en la seva combinatòria. En resum, l’evolució de la forma és més aviat el resultat de com (on i quan) s’utilitzen les proteïnes reguladores que de canvis en aquestes proteïnes. Cal puntualitzar que aquesta estratègia no es dóna solament en els nivells taxonòmics de rang superior; també podem trobar-la en les espècies pròximes i en les poblacions. Una espècie de peix espinós de la família Gasterosteidae presenta dues formes en molts llacs d’Amèrica del Nord: una amb espines reduïdes, que ocupa els fons poc profunds, i una altra amb espines normals, que es troba en aigües obertes. Aquests fenotips són adaptatius. En aigües obertes les espines llargues protegeixen els peixos dels depredadors, però en els fons lacustres els peixos amb espines reduïdes són menys depredats per part de les larves dels odonats (libèl·lules), les quals atrapen els peixos per les seves espines. El principal gen responsable d’aquesta reducció és un gen mestre (Pitch1). Com a bon gen constructor, aquest gen és també el responsable del desenvolupament de les aletes pelvianes dels peixos i de les extremitats posteriors dels mamífers. Quan els investigadors David Kingsley i Dolph Schluter, amb els seus col·laboradors (vegeu Shapiro et al., 2004) van comparar les proteïnes Pitx1 d’ambdues formes de peixos, no van trobar cap diferència. Com calia esperar, les diferències eren que la signatura dels interruptors gènics que regula l’expressió pelviana havia canviat en la forma reduïda i havia desactivat el gen Pitx1
en aquesta regió. L’evolució d’aquestes dues espècies és el resultat de diversos successos d’especiació ecològica al·lopàtrica i simpàtrica (Rundle i Schluter, 2004; vegeu l’altre article de Fontdevila en aquest mateix volum). Aquesta reducció de les extremitats posteriors ha tingut lloc moltes vegades en els vertebrats (p. ex., en els cetacis, les serps i altres tetràpodes sense potes). Però també hi ha molts exemples d’evolució de noves formes en les poblacions. El cas dels patrons de les ales de Drosophila ha estat estudiat a fons. En aquest cas Carroll i el seu equip han desxifrat com els canvis en diversos interruptors de gens codificants d’enzims que sintetitzen melanina són els responsables de la gran diversitat de patrons d’ales en la mosca. Aquests exemples demostren que l’evolució de la forma és ràpida però que no es fa en un sol pas, sinó que sovint és el resultat de diversos canvis reguladors que generen variabilitat seleccionable. En resum, l’evo-devo ens ha demostrat que la complexitat de la forma no és irreductible, com defensen els apòstols del disseny intel·ligent, sinó que es pot reduir a un conjunt de passos graduals, bàsicament en les cascades reguladores del gens mestres del desenvolupament (vegeu l’article de Baguñà en aquest mateix volum). ATZAR, NECESSITAT, OPORTUNISME I... GRADUALISME En el darrer capítol d’aquest volum hi ha una descripció detallada de la història i els arguments dels moviments creacionistes reencarnats actualment en la hipòtesi del disseny intel·ligent (vegeu Forrest i Gross, 2005, per a un tractament exhaustiu). El lector trobarà allà informació rellevant d’algunes fal·làcies dels arguments antidarwinistes, com el de la complexitat irreductible,
24 A. Fontdevila
discutit a fons en l’apartat anterior. Sovint, aquests arguments són adoptats per persones no necessàriament militants d’aquests moviments. Cal preguntar-nos per què els arguments antidarwinistes tenen tant d’atractiu en el ciutadà normal de moltes societats «avançades». És evident que hi ha un component educatiu i religiós, però m’inclino a pensar que moltes vegades manca una comprensió acurada dels mecanismes de l’evolució. Aquests mecanismes no són fàcils d’assolir en la versió actual de la teoria evolutiva (vegeu Fontdevila i Moya, 2003) i requereixen una sòlida formació científica, que inclou la biologia, però també la matemàtica (l’estadística en particular), les ciències físiques i químiques i també les geològiques. Però a diferència d’altres teories del mateix rang de complexitat, com la mecànica quàntica i la relativitat, que ningú no gosaria discutir sense uns coneixements aprofundits, la teoria de l’evolució és motiu de discussions agosarades des de posicions d’aficionats. La selecció natural, el cor de la teoria de l’evolució, és un mecanisme senzill d’entendre en aparença, però la seva contundència amaga una complexitat no immediata. El joc entre l’atzar i la necessitat inherent al mecanisme evolutiu ha estat perfectament perfilat moltes vegades (vegeu Monod, 1971). Malgrat tot, la idea que la meravellosa biodiversitat que observem i, sobretot, que l’extrema «perfecció» conscient, sospitosament egotista, de la nostra espècie, hagin estat el resultat del cec atzar de les mutacions, és intuïtivament inacceptable. I plantejat així és cert. Però no és més cert que el plantejament és fal·laç, sospitosament fal·laç si m’ho permeteu. La mutació és un mecanisme a l’atzar, però la selecció natural és tot menys un procés d’atzar, és un mecanisme que tria només allò (organismes, òrgans, comportaments, estructures en definitiva) que és capaç de sobreviure millor que tota la resta;
és a dir, tria el més apte. És el component de la necessitat i, per tant, és determinista. No som el resultat de l’atzar. L’atzar proporciona la variabilitat heretable però és la selecció natural la que decideix qui és el més apte per evolucionar. El joc entre atzar i necessitat és complicat. La selecció natural no és omnipotent. Ha de jugar en un escenari contingent en el qual, entre altres factors, la transmissió intergeneracional està subjecta als «errors» de mostreig deguts a la mida finita de les poblacions, un mecanisme anomenat deriva genètica, perquè és capaç de canviar les freqüències gèniques segons les lleis estadístiques. Aquest factor no és l’únic. El fet que la selecció natural resol els problemes d’aptitud amb els materials a l’abast en un ambient concret immediat, sense cap previsió futura, fa que sigui necessàriament oportunista. El significat i la importància d’aquest concepte ha estat sovint mal interpretat o obviat. L’oportunisme de la selecció és el que explica l’absència de disseny, la presència dels vestigis i, en definitiva, el caràcter potiner de l’evolució. L’oportunisme explica també que hi hagi moltes solucions diferents per adquirir una nova funció. Una solució consisteix, com ja hem indicat, a cooptar estructures que tenen una funció i utilitzar-les per a una nova funció (exaptació). Alguns casos estan ben documentats, com l’evolució dels ossets de l’oïda mitjana en els mamífers a partir d’antics ossos mandibulars de rèptils, l’evolu ció dels elements proximals de les extremitats dels tetràpodes (els complexos húmerradi-cúbit i fèmur-tíbia-peronè) a partir de les aletes lobulades dels peixos sarcopterigis o les plomes de les aus utilitzades per volar a partir d’estructures de dinosaures teràpodes que mantenien la temperatura. A escala molecular les exaptacions es produeixen moltes vegades a partir de seqüències duplicades. El lisozim és un enzim d’acció
Reconstruint Darwin, cent cinquanta anys després 25
antibiòtica i l’α-lactoalbúmina és una proteïna que regula la biosíntesi de la lactosa. Malgrat que les dues molècules tenen funcions molt diferents, la seva ascendència a partir d’una duplicació gènica té el suport de la gran semblança de la seqüència nucleotídica, de l’organització del DNA gènic i de la configuració tridimensional de les proteïnes. De fet, els membres de les famílies gèniques han adquirit noves funcions per cooptació. Els exemples d’exaptacions són abundants i inclouen també la cooptació de circuits del desenvolupament, dels quals hem parlat més amunt, per evolucionar en noves estructures com les taques oculars de les ales de les papallones o les extremitats dels tetràpodes. Una altra solució és evolucionar independentment diverses vegades per obtenir una mateixa funció a partir d’estructures diferents. Així, les diferents proteïnes dels cristal·lins són exaptacions de proteïnes tan diverses com la lactat-deshidrogenasa (rèptils), la glutatió-S-transferasa (cefalòpodes) o diverses proteïnes heat-shock (vertebrats). Els peixos que viuen en ambients molt freds necessiten anticongelants en la sang i els teixits. Els peixos antàrtics han desenvolupat un gen anticongelant a partir d’un tros d’un gen que codifica un enzim digestiu i de les seqüències adjacents. Els peixos àrtics també tenen un anticongelant. L’estructura de la seva proteïna anticongelant és semblant a la dels peixos antàrtics, la qual cosa suggereix un avantpassat comú. Però diverses proves indiquen el contrari. En primer lloc, els peixos àrtics estan evolutivament molt separats dels antàrtics i pertanyen a dos ordres filogenètics diferents. Molt més contundent és el fet que en els peixos àrtics no es pot trobar cap indici de l’origen d’aquest gen a partir del gen de l’enzim digestiu dels peixos antàrtics. Finalment, les dues proteïnes anticongelants són processades en pèptids mitjançant dife-
rents espaiadors amb enzims diferents. En aquest cas la selecció natural ha generat dues estructures semblants a partir d’orígens diversos perquè la funció anticongelant així ho requereix. Però no sempre una mateixa funció necessita una seqüència proteica semblant. Els verins de molts animals que pertanyen a diferents fílums (serps, escorpins, mol·luscs, anemones, etc.) són proteïnes neurotòxiques que bloquegen els canals de potassi i impedeixen el funcionament normal dels nervis i els músculs de la presa. Aquests verins han evolucionat independentment i les seves seqüències proteiques no s’assemblen, però tenen la mateixa funció mortal. Aquests exemples (vegeu Carroll, 2006, i les referències que conté) no són rés més que una petita mostra de la munió de casos que demostren que l’evolució no genera noves estructures funcionals partint de zero, sinó que utilitza estructures ja existents, les modifica i les combina com ho faria un llauner, més que un dissenyador. Però aquests exemples ens expliquen també que l’evolució és fàcilment repetible. Ateses unes condicions ambientals i temps suficient la selecció natural triarà les mutacions favorables i permetrà que es transmetin a les generacions següents, en detriment de les altres mutacions amb menys valor adaptatiu o sense. Sovint la pregunta que fan els detractors del mecanisme darwinista és si hi ha suficients mutacions en el temps disponible perquè les espècies evolucionin. Una de les genialitats de Darwin fou adonar-se de la immensitat del temps de què disposa l’evolució per actuar. Uns petits càlculs ens demostraran que sí que tenia raó. Si suposem que la taxa de mutació per nucleòtid és de 6 × 10 –8, un valor real per a la majoria d’animals, en cada generació hi haurà un nou nucleòtid per posició en sis-cents milions d’individus. De fet, si tenim en compte que en els organismes diploides hi ha
26 A. Fontdevila
dues còpies del DNA i que cada nucleòtid pot canviar a qualsevol dels tres altres nucleòtids, una mutació concreta es produirà en un de cada nou-cents milions d’individus per generació. Una xifra aparentment enorme que sembla que afavoreix l’argument antidarwinista! Veiem que no és així. Moltes espècies animals consten de més d’un milió d’individus. Si el nombre d’individus produïts per generació i any és de nou-cents mil (per fer nombres rodons), ens hauríem d’esperar com a màxim mil anys per trobar un canvi específic. El temps de divergència de moltes espècies és de milions d’anys. Per exemple, el pas de la visió del violat a l’ultraviolat en les aus es deu a un únic canvi d’adenina (A) a timina (T) en la posició 268 del gen de l’opsina. Aquesta substitució s’ha produït independentment en quatre ordres diferents d’aus, la divergència dels quals està datada en més de deu milions d’anys. En definitiva, en deu milions d’anys aquesta mutació concreta (A → T) s’ha produït més de deu mil vegades (una vegada cada nou-cents anys, exactament). Unes taxes no tan inversemblants com ens diuen els antidarwinistes. Els canvis per generar noves funcions no han de ser tan específics. Hi ha una abundància de casos en què diferents substitucions generen el mateix fenotip, com en el gen del receptor MC1R responsable de la coloració melànica. Si suposem que deu substitucions poden generar el mateix mutant, en mil anys es produiran més de deu mutants segons les dades anteriors. Un cas interessant, desxifrat recentment (Tishkoff et al., 2006), ens explica l’evolució de la tolerància a la lactosa, el sucre de la llet, en els humans. Normalment la lactasa, l’enzim que transforma la lactosa en glucosa i galactosa, dues molècules més digestibles, és desactivada després de la lactància. Però algunes poblacions ramaderes d’Àfrica i del nord d’Europa han evolucionat envers
la tolerància a la lactosa mitjançant la fixació de diverses mutacions que restauren la seva activitat en els adults. El que és interessant és que les mutacions en les poblacions europees són diferents de les africanes i han evolucionat independentment. Aquest és un exemple d’evolució convergent ràpida, entre tres mil i set mil anys a l’Àfrica, i del fet que diferents canvis nucleotídics poden evolucionar envers la mateixa funció. Sabem que la probabilitat que una mutació es perdi és alta, encara que sigui avantatjosa. La probabilitat que una mutació es fixi en una població gran és aproximadament dues vegades el seu coeficient de selecció (s); per tant la ràpida expansió del mutant restaurador de la persistència de la lactosa a l’Àfrica indica que l’avantatge selectiu seria alt. Si s val 0,10, un valor probable en aquest cas (Tishkoff et al., 2006), la probabilitat de fixació és del 20 %, és a dir, que vint mutacions cada deu mil anys seran fixades en les poblacions si es compleixen les condicions anteriors. Però el temps de generació en humans és més gran, almenys entre quinze i vint anys en el període considerat. Per tant, el nombre de generacions en deu mil anys és de 500-700, la qual cosa dóna entre una i dues mutacions restauradores fixades, uns valors que concorden amb les mutacions observades. Aquests càlculs, encara que poden resultar feixucs per a un lector no especialitzat, serveixen per demostrar que la improbabilitat de l’evolució per selecció natural sobre les mutacions a l’atzar no està fonamentada, com pretenen dogmatitzar els antidarwinistes. És clar que ja sabem que tota l’evolució no depèn de canvis nucleotídics puntuals; molta variabilitat es genera mitjançant recombinació, transposició, duplicació, simbiosi i altres mecanismes. Però aquests mecanismes encara faciliten més l’acció de la selecció natural perquè augmenten la variabilitat a l’abast. Sovint s’ha tractat d’atri-
Reconstruint Darwin, cent cinquanta anys després 27
buir a aquests mecanismes el paper director de l’evolució. Això ha estat palès en el cas de la simbiosi. Cal dir aquí que és un error confondre la variabilitat fenotípica fruit d’una gran diversitat de mecanismes generadors de variabilitat, des dels canvis nucleotídics fins als cromosòmics i els genòmics, globals o parcials, amb l’agent selectiu decisori de quins d’aquests canvis passen a les generacions següents. Aquest agent és la selecció natural, sempre amb el permís de la deriva genètica, és clar. L’altre argument antidarwinista de la improbabilitat de l’evolució gradual de les estructures complexes ja ha estat discutit abans. Aquí només cal recordar que el gradualisme és possible en aquests casos perquè l’oportunisme del procés selectiu és no solament aprofitar i partir d’estructures més simples sinó, i sobretot, que a cada pas es genera una estructura que funciona millor que l’anterior i és apta per sobreviure amb avantatge i enfrontar-se als desafiaments del nou ambient. Aquest gradualisme, que ja hem dit que no afecta necessàriament la variabilitat codificant i, sobretot en el cas de l’evolució morfològica, pot ser majoritàriament regulador, ha estat motiu recentment d’àmplies crítiques, principalment per part d’alguns genètics del desenvolupament. CODA: DARWIN RECONSTRUÏT O SUBSTITUÏT? El 19 de març de 2006 el diari El País, en la secció «Sociedad», va publicar un article titulat «Se busca un nuevo Darwin», signat per Javier Sampedro, autor del llibre Deconstruyendo a Darwin (2002). Els intents de substituir el darwinisme per una altra hipòtesi evolutiva són un «esport» freqüent en els mitjans de comunicació i també en alguns cercles intel·lectuals des de fa moltes dècades. Concretament, es tracta de posar
en dubte que el mecanisme de descendència amb modificació mitjançant la selecció natural pugui explicar l’evolució dels grans patrons corporals dels fílums. Per a alguns evolucionistes, com Eric H. Davidson i Douglas H Erwin (2006), «els mecanismes darwinistes del canvi només són rellevants en els nivells filogenètics més baixos» (El País, 2006). El fonament d’aquesta opinió està, segons ells, en els descobriments de l’evo-devo. Aquesta no és una opinió general, però. Altres evolucionistes com Sean B. Carroll, afirmen amb fermesa que «l’evo-devo demostra que la macroevolució és el producte de la microevolució a gran escala» (Carroll, 2005, p. 291). L’argument darwinista en la seva versió de la nova síntesi no el posa en dubte actualment cap evolucionista quan s’aplica a l’origen de la diversitat específica i poblacional. Els arguments antidarwinistes en aquests nivells pertanyen a cercles creacionistes totalment desacreditats, malgrat la seva popularitat. Però no ha estat sempre així. El redescobriment de la genètica a principis del segle xx va explicar dos punts foscos de la teoria darwinista de l’evolució: a) la variabilitat discontínua (mutacions) observada de Bateson a de Vries, sense haver-la d’explicar segons la doctrina dels caràcters adquirits, i b) el manteniment de la variabilitat genètica en les poblacions (la famosa llei de Hardy-Weinberg), impossible d’explicar segons l’herència de les mescles. Semblava, doncs, que el darwinisme quedava totalment provat. Però la història ens demostra tot el contrari. Les lleis mendelianes basades en caràcters discontinus no justificaven aparentment la variabilitat contínua, que era precisament el substrat sobre el qual els darwinistes feien actuar la selecció natural gradualista. Aquest raonament va portar Bateson i de Vries, entre molts altres genètics, a considerar que l’evolució era discon-
28 A. Fontdevila
tínua i promoguda per mutacions de gran efecte, en què la selecció natural tenia només un paper secundari. Thomas Morgan, un dels genètics més influents de l’època i Premi Nobel, va publicar un llibre (Evolució i adaptació, 1903), en el qual defensava que el curs de l’evolució estava determinat pels tipus de mutacions, i llavors no quedava cap paper significatiu per a la selecció. Era paradoxal que la genètica, que estava ajudant el darwinisme a produir un model coherent de l’origen i la transmissió dels caràcters heretables, s’estava erigint en l’opositor més ferm de la teoria de l’evolució segons la selecció natural. No cal dir que aquesta hipòtesi mutacionista va estar descartada pels experiments de genètica quantitativa i pels treballs teòrics dels genètics de poblacions que demostraven que la selecció natural podia actuar sobre la variabilitat contínua de les poblacions i explicar el canvi evolutiu (vegeu Fontdevila i Moya, 1999; 2003, per a una documentació històrica). Però aquesta retrospectiva sobre el mutacionisme és adient aquí perquè sembla com si els recents avenços en genètica del desenvolupament estiguin desafiant el darwinisme de la mateixa manera com ho van fer els avenços en genètica fa quasi un segle. En la present introducció he tractat de donar algunes pinzellades sobre aspectes rellevants per a la comprensió de com la selecció natural actua tant sobre la variabilitat codificant com sobre la variabilitat reguladora del desenvolupament. Aquesta variabilitat no estava prevista en la nova síntesi (vegeu, però, Huxley, 1942), i esta resultant ser la més determinant del canvi morfològic, la qual cosa obliga a una reestructuració de la teoria evolutiva. Però d’això a creure que els principis del darwinisme ja no són operatius hi ha tot un abisme. Tot el contrari. Els nous avenços de l’evodevo, molt importants però encara en fases
preliminars, reforcen més que no debiliten els principis darwinistes. Vegem-ne alguns aspectes. La inesperada antiguitat i conservació dels gens del desenvolupament, juntament amb la seva acció ubiqua en òrgans i estructures, com el cor, l’ull i les extremitats, en diferents grups animals, dels cnidaris als artròpodes i als cordats, dóna suport a la unitat de tipus i l’acció constructiva gradual de l’evolució a partir d’estructures anteriors (les antigues xarxes de gens reguladors). Dos puntals del darwinisme. Un altre principi darwinista, la generació de variabilitat gradual, és la inevitable conseqüència de les xarxes reguladores mateixes, que generen un enorme nombre de combinacions de factors reguladors i signatures d’interruptors gènics en cis. Els canvis mutacionals en aquests components, que són de la mateixa naturalesa que els canvis en zones codificants, desencadenen noves xarxes que poden obrir nous patrons corporals. Tanmateix, no totes les xarxes són igualment aptes, i qui en decideix l’aptitud i persistència és... la selecció natural. Goldschmidt (1940) va proposar que els canvis evolutius que determinen els diferents fílums són deguts a uns tipus de macromutacions, anomenades sistèmiques, que no tenen res a veure amb les micromutacions de què ens parlen els genètics de poblacions, i que aquests canvis, anomenats per ell «monstres prometedors», i no la selecció natural, són els directors del canvi evolutiu. Des d’aleshores han anat sorgint, més o menys disfressades, diverses versions de macromutacions directores de l’evolució. En alguns casos són els registres paleontològics discontinus o explosius els que s’utilitzen per donar suport al paper cabdal d’aquestes mutacions, com és el cas de l’explosió càmbrica i el puntuacionisme. En altres casos són els canvis en els patrons del desenvolupament corporal els que protagonitzen la defensa de les macromutacions,
Reconstruint Darwin, cent cinquanta anys després 29
com ja hem explicat en la teoria de l’evo-devo. Altres vegades l’origen d’aquestes macromutacions sembla que s’explica segons les grans associacions simbiòtiques, com en la hipòtesi simbiogènica, o fins i tot amb «revolucions» genòmiques promogudes per les duplicacions o les transposicions. En totes aquestes propostes es nega el paper director de la selecció natural en favor d’altres mecanismes, normalment sense definir, que «constrenyen» la seva acció. Moltes d’aquestes propostes, si no totes, opino que són fruit del nostre encara incipient coneixement dels mecanismes biològics. Afortunadament, les darreres dècades ens estan proporcionant una allau de coneixements que amb prou feines podem començar a entendre. Però sempre que hem pogut fer una anàlisi aclaridora de les noves dades, l’espectre director dels monstres prometedors s’ha esvaït, tal i com hem explicat en l’anàlisi del puntuacionisme, de l’explosió càmbrica i, sobretot, en el model de les xarxes reguladores del gens del desenvolupament. Per contra, aquestes anàlisis ens han demostrat que, si bé els nous mecanismes moleculars generadors de variabilitat són molt més complexos del que pensàvem, estan sotmesos als processos darwinistes d’oportunisme (cooptació) i aptitud (selecció natural) de manera gradual. Buscar un nou Darwin no sembla, per tant, molt assenyat. En comptes de substituir, avui la tasca dels evolucionistes és tractar de reconstruir una teoria de la descendència amb modificació que ompli les llacunes de la nova síntesi. Fins ara, aquesta tasca ens esta apropant més que mai a les idees originals de Darwin, és a dir, al paper primordial de la selecció natural en l’evolució i en particular a l’origen de les espècies, com queda palès en els capítols d’aquest volum. El darwinisme és una idea perillosa, com hem explicat a l’inici, però no per això és menys esplendorosa que altres idees fruit
del mite i la imaginació. La seva esplendor superior prové del seu origen en un llinatge d’hominins evolucionats que exigeixen proves racionals abans d’acceptar qualsevol explicació d’un fet i que, sense cap dogmatisme, accepten sempre un canvi d’explicació si noves proves ho demostren. Heus aquí la diferència entre ciència i dogma. AGRAÏMENTS L’autor agraeix a Montserrat Peiró la seva col·laboració en el dibuix de les figures. Aquest treball és en part el resultat de les converses amb molts dels meus estudiants, col·laboradors i col·legues, i de la meva recerca en evolució finançada per nombrosos ajuts del Ministeri d’Educació i Ciència, dels fons FEDER de la Unió Europea i de la Generalitat de Catalunya. A tots ells manifesto aquí la meva gratitud. Tanmateix, les idees i les propostes d’aquest treball són exclusivament responsabilitat meva. BIBLIOGRAFIA Babcock, L. [en línia] (2008). <http://news.national geographic.com/news/2008/10/081010-oldest-footprints.html>. Bateson, W. (1894). Materials for the study of variation treated with especial regard to discontinuity in the origin of species. Londres i Nova York: Macmillan & Co. Blair, J. E.; Hedges, S. B. (2005). «Molecular clocks do not support the Cambrian explosion». Mol. Biol. Evol., 22: 387-390. Carroll, S. B. (2005). Endless forms most beautiful. Nova York i Londres: Norton & Co. — (2006). The making of the fittest. Nova York: Norton & Co., 151-155. Davidson, E. H.; Erwin, D. H. (2006). «Gene regulatory networks and the evolution of animal body plans». Science, 311: 796. Dawkins, R. (1986). The blind watchmaker. Nova York: Norton & Co. — (2006). The God delusion. Nova York: Houghton Mifflin Co.
30 A. Fontdevila
Dennet, D. C. (1995). Darwin’s dangerous idea. Londres: Penguin Press. Eldredge, N. (2005). Darwin. Discovering the tree of life. Nova York: Norton & Co., 127. Eldredge, N.; Gould, S. J. (1972). «Punctuated equilibria: An alternative to phyletic gradualism.» A: Schopf, T. J. M.; Thomas, J. M. [ed.]. Models in paleobiology. Nova York: Freeman, 82-115. Fontdevila, A.; Moya, A. (1999). Introducción a la genética de poblaciones. Madrid: Síntesis. — (2003). Evolución: origen, adaptación y diversificación de las especies. Madrid: Síntesis. Forrest, B.; Gross, P. R. (2005). Creationism´s trojan horse. Oxford: Oxford University Press. Futuyma, D. (2005). Evolution. Sunderland: Sinauer Associates, Inc. Goldschmidt, R. (1940). The material basis of evolution. New Haven i Londres: Yale University Press. Gould, S. J. (1993). La vida maravillosa. Barcelona: Crítica. Hoekstra, H. E.; Coyne, J. A. (2007). «The locus of evolution: evo devo and the genetics of adaptation». Evolution, 61: 995-1016. Huxley, J. (1942). Evolution, the modern synthesis. Londres: George Allen & Unwin Ltd. Jacob, F. (1982). El juego de lo posible. Barcelona: Grijalbo. Jacob, F.; Monod, J. (1961). «Genetic regulatory mechanisms in the synthesis of proteins». J. Mol. Biol., 3: 318. Levinton, J. S. (2001). Genetics, paleontology, and ma croevolution. Cambridge: Cambridge University Press. Mayr, E. (1942). Systematics and the origin of species. Cambridge: Harvard University Press. — (1963). Animal species and evolution. Cambridge: Harvard University Press. Miller, J. D.; Scout, E. C.; Okamoto, S. (2005). «Public acceptance of evolution». Science, 313: 765-766.
Monod, J. (1971). El azar y la necesidad. Barcelona: Barral. Moreno, J. (2008). Los retos actuales del darwinismo. ¿Una teoría en crisis? Madrid: Síntesis. Morgan, T. H. (1903). Evolution and adaptation. Nova York: Macmillan. Quiring, R.; Walldorf, U.; Kloter, U.; Gehring, W. J. (1994). «Homology of the eyeless gene of Drosophila to the Small eye gene in mice and Aniridia in humans». Science, 265: 785-789. Rundle, H. D.; Schluter, D. (2004). «Natural selection and ecological speciation in sticklebacks». A: Dieckmann, U.; Doebeli, M.; Metz, J. A. J.; Tautz, D. [ed.]. Adaptive speciation. Cambridge: Cambridge University Press, 192–209. Salwini-Plawen, L. V.; Mayr, E. (1977). «On the evolution of fotoreceptors and eyes». Evolutionary Biology, 10: 207-263. Sampedro, J. (2002). Deconstruyendo a Darwin. Barcelona: Crítica. Shapiro, M. D.; Marks, M. E.; Peichel, C. L.; Blackman, B. K.; Nereng, K. S.; Jonsson, B.; Schluter, D.; Kingsley, D. M. (2004). «Genetic and developmental basis of evolutionary pelvic reduction in threespine stickleback». Nature, 428: 717-723. Smolin, L. (2007). «Seeing Darwin in the light of Einstein; Seeing Einstein in the light of Darwin». A: Brockmam, J. [ed.]. What is your dangerous idea? Nova York: Harper Perennial, 112-116. Tishkoff, S. A. [et al.] (2006). «Convergent adaptation of human lactase persistence in Africa and Europe». Nature Genetics, 39: 31-40. Wray, G. A.; Levinton, J. S.; Shapiro, L. H. (1996). «Molecular evidence for deep Precambrian divergences among metazoan phyla». Science, 274: 568573.
DOI: 10.2436/20.1501.02.75
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 31-44
A PARTIR D’UN INICI TAN SIMPLE. L’ORIGEN DE LA VIDA: UN PROBLEMA DE QUÍMICA AMB HISTÒRIA Juli Peretó Institut Cavanilles de Biodiversitat i Biologia Evolutiva, Departament de Bioquímica i Biologia Molecular, Universitat de València i CIBER d’Epidemiologia i Salut Pública. Adreça per a la correspondència. Juli Peretó. Unitat de Genètica Evolutiva, Institut Cavanilles de Biodiversitat i Biologia Evolutiva, Universitat de València. Polígon de la Coma, s/n. 46980 Paterna. Adreça electrònica: pereto@uv.es. RESUM La teoria de Charles R. Darwin s’ocupava de l’evolució de la vida, no del seu origen. Darwin va considerar que el coneixement científic no estava prou madur per atacar un problema d’aquesta magnitud. Segle i mig després, els avenços en biologia, geologia, química i astronomia fan possible l’elaboració de models i hipòtesis en el marc de la teoria evolutiva de l’origen de la vida proposada per Aleksandr I. Oparin. Fa uns quatre mil milions d’anys, la Terra estava dotada d’un inventari divers de materials orgànics producte de la química volcànica, atmosfèrica i còsmica. L’emergència de la complexitat química assolí un moment crític quan s’inventaren els polímers replicatius, ja que així l’optimització per selecció natural i la contingència històrica s’afegien al determinisme de la química abiòtica. Aquests polímers genètics s’originarien en el context d’un protometabolisme encapsulat en vesícules lipídiques. El moment clau de l’origen de la vida fou l’articulació harmoniosa de sistemes supraquímics (o infrabiològics), com ara la membrana, el metabolisme i els polímers replicatius, en les condicions de la Terra primitiva. Per bé que desconeixem la majoria dels detalls, els processos implicats en l’emergència de la vida són científicament comprensibles i experimentalment reproduïbles. Paraules clau: química prebiòtica, protocèl·lula, protometabolisme, món de l’RNA. FROM SO SIMPLE A BEGINNING. ORIGIN OF LIFE: A PROBLEM OF CHEMISTRY WITH HISTORY. SUMMARY Charles R. Darwin’s theory was on the evolution of life but not on its origin. The scien-
32 J. Peretó
tific knowledge was considered by Darwin not developed enough to attack such a difficult problem. After 150 years, advances in biology, geology, chemistry or astronomy have allowed us to elaborate models and hypotheses within the framework of the evolutionary theory on the origin of life proposed by Aleksandr I. Oparin. About 4 billion years ago, a rich inventory of organic compounds accumulated on the Earth, as a product of volcanic, atmospheric, and cosmic chemistry. During the emergence of chemical complexity, a critical point was reached with the invention of replicative polymers, given that the optimization by natural selection and the historical contingency were added to the determinism of abiotic chemistry. These genetic polymers appeared in the context of a protometabolism encapsulated within lipid vesicles. The landmark of the origin of life was the harmonious articulation of suprachemical (or infrabiological) systems, like membranes, metabolism and replicative polymers, under the conditions of the primitive Earth. Albeit most details still remain unknown, the processes involved in the emergence of life are scientifically comprehensible and experimentally reproducible. Key words: prebiotic chemistry, protocell, protometabolism, RNA world. Si (i oh, quin gran si) hom pogués imaginar en un bassalet calent amb tota mena de sals amòniques i fosfòriques –i en presència de llum, calor, electricitat, etc.— que un compost proteic es formà químicament, preparat per so frir canvis encara més complexos, actualment aquesta matèria seria instantàniament devorada o absorbida, però això no hauria ocorregut abans que es formaren els éssers vivents. Carta de C. R. Darwin a J. D. Hooker (1 de febrer de 1871). EL QUE A DARWIN LI HAGUÉS AGRADAT SABER Charles R. Darwin mai no va discutir en públic les seves opinions sobre l’origen de la vida. A través de la seva correspondència i d’altres escrits sabem avui que aquest problema li preocupava, el trobava una qüestió cabdal per completar la teoria però alhora considerava que la ciència no estava bastant madura per atacar-lo. En la frase final de L’origen de les espècies diu que «la vida fou insuflada originalment pel Creador en una o unes poques formes». Si bé els creacionistes han manipulat aquest text fins a la
nàusea, cal recordar que «pel Creador» fou un afegit a partir de la segona edició del llibre i que Darwin, anys després, va lamentar profundament haver fet aquest canvi. Sense eixir del mateix llibre, ja en la darrera i definitiva edició (1872) Darwin reconeix que la ciència no ha pogut demostrar fins llavors la producció d’éssers vivents a partir de matèria inorgànica «sigui el que sigui allò que en el futur es pugui descobrir» (Peckham, 1959). El mateix any escrivia una carta al codescobridor de la selecció natural, Alfred R. Wallace, en què compartia amb ell els pensaments que li havia suggerit la lectura del llibre més recent de Henry C. Bastian, un metge que tractava de demostrar que Louis Pasteur s’equivocava i que la generació espontània era possible: «M’agradaria viure per veure confirmat un descobriment tan transcendent [com el de la generació espontània]», deia Darwin, «o, si resulta ser falsa, m’agradaria veure-la refutada i conèixer l’explicació alternativa per a les observacions [de Bastian]; però no viuré prou per veure-ho».
L’origen de la vida: un problema de química amb història 33
DE PASTEUR A OPARIN: EL DEBAT DE LA GENERACIÓ ESPONTÀNIA La teoria de Darwin exigia, per pura coherència, un origen natural per a la vida. En aquell moment l’única explicació a l’abast era la generació espontània que des de JeanBaptiste Lamarck havia estat associada al problema de l’emergència dels éssers més simples. D’una banda, els experiments de Pasteur i John Tyndall deixaven poc marge a l’aparició sobtada de microorganismes. Per bé que, lluny del que hem après en la majoria dels llibres de text, la creença en l’emergència natural de microorganismes en les condicions presents no va desaparèixer del tot. Així, mentre a França es produïa una veritable pasteurització epistemològica de la qüestió de la generació espontània (Maurel, 1999), a l’Anglaterra victoriana el debat seguia viu, sobretot de la mà dels experiments publicats per Bastian (Strick, 2000). La tensió intel·lectual entre l’acceptació d’una evolució moguda per forces naturals i les observacions en contra de la generació espontània fou resolta de maneres diverses en diferents contextos culturals (Farley, 1977). Així, alguns evadiren el dilema postulant que la vida era eterna i que devia provenir de l’espai exterior. Per tant, no hi hauria hagut un origen de la vida a la Terra. En la dècada de 1870 aquesta proposta fou defensada per científics com William Thompson (Lord Kelvin), Hermann von Helmholtz, Richter, Ferdinand Cohn i Frederick Lange i, més tard, per Svante Arrhenius (Farley, 1977). Entre els científics catòlics va prosperar el neovitalisme, que postulava una intervenció sobrenatural en l’origen de la vida. Un dels autors més influents en aquest sentit fou l’entomòleg alemany Erich Wasmann, que fou seguit fervorosament per científics religiosos com el jesuïta de Besalú Jaume Pujiula (Peretó, 2000).
En un context evolutiu cal reconèixer que qui més va reflexionar sobre la necessitat d’algun tipus de generació espontània fou Ernst Haeckel. Tan enjorn com el 1862, Haec kel ja es lamentava que Darwin no fos coherent perquè no tractava la qüestió de l’origen de la vida. En la seva Història natural de la creació (1868), l’evolucionista alemany proposava una transició dels carbonats inorgànics a les substàncies protoplasmàtiques més simples (autogònia) i, a partir d’aquestes, la diferenciació (o plasmogònia) d’uns organismes primitius, els monera. Fins i tot, per un moment es va creure que s’havien descobert en els fons marins les substàncies protoplasmàtiques indiferenciades que Thomas H. Huxley batejà com Bathybius haeckelii. Però, fins i tot després de saber-se que era un artefacte, la discussió sobre la generació espontània en la Terra primitiva continuà molt viva. Perquè el principi fonamental sobre el qual treballava Haeckel i els seus seguidors —com l’anatomista valencià Pelegrí Casanova i Ciurana— era molt ferm: el monisme haeckelià proposava que en la matèria viva no hi ha res d’essencialment diferent de la matèria inerta i que tots els processos naturals estan vinculats per connexions materials, causals i històriques. En aquest context va florir també la idea que es podia construir un pont experimental entre la matèria purament química i la matèria vivent, un esforç per la via sintètica que permetria no sols comprendre l’essència de la vida sinó simular els processos del seu origen evolutiu. Jacques Loeb i el seu ideal mecanicista, Alfonso L. Herrera i la plasmogènia o la biologia sintètica de Stéphane Leduc són exponents remarcables d’aquests episodis de l’explicació biològica que han estat oblidats per la història oficial de la biologia (Peretó i Català, 2007; Peretó et al., 2008). El procés de secularització i molecularització de la biologia, a principis del segle xx,
34 J. Peretó
va propiciar el refinament conceptual de les propostes sobre l’origen de la vida. Així, Leonard T. Troland va proposar que el primer sistema vivent seria un enzim originat per atzar als mars primitius, dotat de propietats autocatalítiques (replicació) i heterocatalítiques (metabolisme) —una noció que anticipa el model modern del món de l’RNA. D’altra banda, Hermann J. Muller va especificar que la molècula primordial, originada autotròficament, seria un gen que, a més de replicar-se i catalitzar reaccions metabòliques, mutaria (Fry, 2006). Els primers autors que tractaren de contextualitzar el problema de l’origen de la vida amb les informacions disponibles de l’astronomia, la geologia, la química o la biologia foren Aleksandr I. Oparin i John B. S. Haldane. Ambdós, de manera independent, partiren del rebuig a la simplicitat mecanicista de la generació espontània: quaranta anys abans Karl von Nägeli havia declarat que «negar la generació espontània equival a proclamar un miracle» (citat per Maurel, 1999) però l’incipient desenvolupament de la bioquímica obligava a invertir els termes. Ara era la generació espontània la que semblava un miracle i la solució estava en el principi filosòfic de la continuïtat (Fry, 1995). En efecte, amb la proposta d’una evolució química Oparin (1924) i Haldane (1929) adoptaren un esquema evolucionista i materialista que inclou continuïtat i innovació: la vida aparegué de manera natural a partir de la matèria inanimada a través d’estadis intermedis i aquest procés originà propietats biològiques úniques (Fry, 2006). De fet, Oparin identificà les propietats dels éssers vivents (metabolisme, reproducció, etc.) i conclogué que aquestes manifestacions es poden trobar per separat en sistemes no biològics. Tanmateix, els sistemes vivents són els únics en què totes aquestes propietats apareixen reunides harmoniosament (Oparin, 1924). El problema de l’origen
de la vida queda reduït, per a Oparin, a l’articulació d’aquestes propietats en un mateix sistema químic en les condicions de la Terra primitiva. Amb tot, l’aportació més notable de les idees d’Oparin i Haldane fou la proposta d’un veritable programa de recerca experimental que incloïa la síntesi de vida artificial, un aspecte que el connecta amb els corrents actuals de la biologia sintètica (Peretó, 2006; Peretó i Català, 2007; Peretó et al., 2008). LA CERCA CIENTÍFICA DE L’ORIGEN DE LA VIDA A partir de les propostes d’Oparin i Haldane hom pot dir que es desenvolupa la recerca científica, teòrica i experimental, sobre l’origen de la vida. La base epistemològica d’ambdues visions és la convicció que l’emergència de la vida en la Terra primitiva fou el resultat d’uns processos naturals que podem descobrir, comprendre i simular. Un element del debat, tanmateix, ha estat la contribució de l’atzar en aquests processos. Jacques Monod considerava l’origen de la vida com el resultat d’esdeveniments contingents molt improbables: «l’univers no estava prenyat de vida, ni la biosfera d’humans» (Monod, 1970). Francis Crick sostenia que l’origen de la vida fou gairebé un miracle (Crick, 1981) i, per tant, és un problema científicament inassolible. No obstant això, els científics dedicats a la qüestió dels orígens o que preveuen la hipòtesi de vides extraterrestres adopten, explícitament o implícitament, la preeminència dels processos deterministes: Christian de Duve ha invocat un determinisme químic en l’origen de la vida i deixa un marge molt estret a les contingències (Duve, 2005a). Tanmateix, Stephen J. Gould proclamava la inevitabilitat de l’origen de la vida si es donen les condicions adients, però afegia que
L’origen de la vida: un problema de química amb història 35
«la pregunta de les preguntes queda reduïda a l’establiment del límit entre la predictibilitat sota la llei invariable i les múltiples possibilitats de la contingència històrica» (Gould, 1989). Hom pot legítimament qualificar aquestes posicions deterministes com darwinistes en estat pur, ja que Darwin va expressar en privat la mateixa idea a través d’una carta adreçada el 1871 al seu amic, el botànic Joseph D. Hooker (citada al principi). Després de la Segona Guerra Mundial es donaren les circumstàncies intel·lectuals i sociològiques per engegar un veritable programa de recerca experimental en l’origen de la vida. En aquest sentit, foren decisives les aportacions teòriques de Harold C. Urey sobre la composició de l’atmosfera primitiva i l’obstinació i audàcia d’un jove estudiant de la Universitat de Chicago, Stanley L. Miller (Peretó i Lazcano, 2003). El context científic estava amanit: si la biologia evolutiva era ja una branca respectable de les ciències de la vida, la recerca experimental sobre l’origen de la vida entrava ara per la porta gran dels laboratoris de química. La guerra freda va fer també el seu paper: els programes espacials iniciats a finals de la dècada dels cinquanta portaren associat un entusiasme per la possible detecció de formes de vida en altres llocs del sistema solar. Les anàlisis químiques de mostres extraterrestres (lunars o de meteorits) foren les primeres finestres obertes a una química allunyada en l’espai i el temps, però que ens apropava a l’ambient dels orígens materials de la vida. Finalment, en les dècades dels seixanta i setanta, l’enfocament molecular de l’evolució i la reconstrucció d’una filogènia universal (Sapp, 2003), el descobriment dels microorganismes extremòfils (Gross, 1998), així com el desenvolupament de la micropaleontologia (Schopf, 1999) constituïren els fonaments per bastir una mirada retrospectiva des de la biosfera actu-
al fins a les fases més remotes de l’evolució cel·lular. APROXIMACIONS A L’ORIGEN DE LA VIDA: ASCENDENT I DESCENDENT Per simplificar podem convenir que hi ha dues maneres d’aproximar-se a l’origen de la vida: a) ascendent, des dels ingredients i processos primordials en la Terra primitiva, considerant tots els condicionants cosmoquímics i geoquímics, fins a les formes cel·lulars més primitives, i b) descendent, a través de la bioquímica comparada de tots els llinatges cel·lulars actuals, fins al seu avantpassat comú universal. En aquest treball només ens ocuparem de la primera d’aquestes aproximacions. Cal tenir ben presents les limitacions d’aquestes estratègies, en particular, la manca de dades directes que ens informen sobre l’ambient de la Terra en l’època de l’origen de la vida, en el primer cas, i la impossibilitat metodològica d’extrapolar les conclusions filogenètiques més enllà de les etapes en les quals les biomacromolècules (gens de DNA, proteïnes) ja estaven establertes com a actors de la vida cel·lular. L’estratègia ascendent ha de basar-se en la química, ja que ens referim a la transició de la geoquímica a la bioquímica. Aquesta transició ocorregué en una època molt remota dels temps geològics, fa uns quatre mil milions d’anys (vegeu més endavant), una llunyania que ho complica tot extraordinàriament. La química abiòtica, una extensió de la química orgànica sintètica, inclou aspectes de la cosmoquímica i l’astroquímica, la geoquímica o la química atmosfèrica. D’altra banda, quan la química abiòtica —el que és químicament possible— es posa en context històric i, sobretot, cerca les matèries primeres i els processos conduents a
36 J. Peretó
una organització més intricada representada pels complexos supraquímics (o infrabiològics), antecedents directes de les cèl·lules més primitives, podem parlar de química prebiòtica pròpiament dita. Tota la química abiòtica —per exemple, la cosmoquímica— no és rellevant per al problema de l’origen de la vida: quina fracció de la química abiòtica és considerada prebiòtica dependrà críticament dels nostres coneixements sobre l’ambient primitiu i, lògicament, canviarà amb el temps, amb la maduresa del coneixement i els prejudicis dels científics. Amb tot, els objectius epistemològics finals de la química prebiòtica s’identifiquen amb els d’una de les tradicions més antigues de la biologia sintètica (Peretó i Català, 2007; Peretó et al., 2008). QUAN S’ORIGINÀ LA VIDA? L’interval de temps que va des de les èpoques en les quals les condicions ambientals foren compatibles amb la vida —especialment, l’existència d’una hidrosfera estable— i l’antiguitat dels indicis de vida més antics que hom pot caracteritzar, definiria la finestra temporal per a la transició de la matèria inerta a la viva. La definició dels extrems d’aquest interval està plena de dificultats. L’anàlisi de la forma i grandària dels cràters lunars ha permès de calcular la freqüència i l’energia dels impactes en les fases avançades de la formació del sistema Terra-Lluna. S’ha establert que, al voltant de fa uns 3.900 milions d’anys (3,9 Ga; 1 Ga = 109 anys) es va produir el darrer episodi de bombardeig intens, amb impactes suficientment energètics per evaporar tota l’aigua líquida del planeta. Aquest episodi marcaria un límit superior per a l’antiguitat de la vida i dels processos de química prebiòtica. D’altra banda existeix un debat molt in-
tens sobre l’edat de les restes de vida més antigues. Per començar, la demostració de la biogenicitat en mostres geològiques tan velles requereix excloure la possible contaminació microbiana en èpoques posteriors i, alhora, la convergència de dades morfològiques, químiques, isotòpiques i mineralògiques que siguin millor explicades per l’acció biològica que per fenòmens abiòtics (López-García et al., 2006). El paleontòleg William Schopf defensa l’existència de microfòssils d’uns 3,5 Ga d’antiguitat i d’una gran semblança als actuals cianobacteris (Schopf, 1993; Schopf et al., 2002). La biogenicitat d’aquestes restes ha estat posada en dubte per investigadors que suggereixen explicacions abiòtiques per a l’origen d’aquestes estructures (Brasier et al., 2002; García-Ruiz et al., 2003). Les anàlisis de desviacions isotòpiques suposadament produïdes per metabolismes primitius encara desplacen l’existència de vida envers èpoques anteriors, vora 3,8 Ga, edat de les roques sedimentàries més antigues que es coneixen, en la formació Isua o a l’illa d’Akilia, ambdues a Grenlàndia. Aquestes anàlisis isotòpiques tampoc no estan exemptes de polèmiques sobre la seva biogenicitat, ateses les possibles modificacions causades per processos geològics metamòrfics (Zuilen et al., 2002). No obstant això, diverses observacions són compatibles amb l’existència de bacteris arqueans. Així, s’han descrit estromatòlits —estructures biosedimentàries produïdes per comunitats bacterianes— de 3,43 Ga a Austràlia occidental (Altwood et al., 2007), mentre que la composició de sílex sud-africà de 3,4 Ga indica que es va formar en un ambient marí habitat per bacteris fotosintètics anaerobis (Tice i Lowe, 2004). Això voldria dir que la vida s’hauria originat tan aviat com les condicions ambientals ho van permetre i que, ràpidament, devien proliferar els ecosistemes procariòtics més diversos.
L’origen de la vida: un problema de química amb història 37
En qualsevol cas, lluny del prejudici darwinista de la lentitud del procés evolutiu, no es devien necessitar períodes de temps extremadament dilatats per a la transició de la matèria inerta a la matèria viva (Lazcano i Miller, 1994). LA QUÍMICA ORGÀNICA PREBIÒTICA La recerca en síntesi orgànica en condicions prebiòtiques des dels estudis pioners de Miller ha considerat tres fonts principals de materials per a l’origen de la vida: la química atmosfèrica i de la superfície dels mars, la química volcànica i la química extraterrestre. Una de les limitacions més grans amb la qual ens hem d’enfrontar és l’escàs coneixement sobre l’ambient de la Terra primitiva. La composició de l’atmosfera ha estat objecte d’atenció especial. Existeixen pocs dubtes que, en l’època de l’origen de la vida (entre 3,8 i 3,4 Ga abans del present), l’atmosfera no era ja l’original del planeta en formació, sinó que havia estat substituïda (una o més vegades) per gasos produïts per l’interior planetari i per l’aportació de volàtils dels objectes que impactaven a la superfície (p. ex., cometes). L’atmosfera devia estar dominada pel vapor d’aigua, el diòxid i el monòxid de carboni, així com el dinitrogen, amb quantitats menors d’hidrogen, diòxid de sofre i sulfur d’hidrogen. Els gasos reduïts (com ara, metà i amoníac) i l’oxigen molecular devien ser molt escassos o absents (Kasting, 1993). El paper dels diferents gasos atmosfèrics i la seva reactivitat impulsada per diverses fonts d’energia (descàrregues elèctriques, calor, radioactivitat, etc.) han estat investigats des de la dècada dels cinquanta en laboratoris arreu del món. Mitjançant mecanismes que ja eren coneguts pels químics orgànics del segle xix, aquestes reacci-
ons subministren una diversitat àmplia de molècules potencialment prebiòtiques, com són ara aminoàcids, bases nitrogenades, lípids simples, sucres, etc. (vegeu alguns exemples a la taula 1). Alguns d’aquests experiments s’han basat en models atmosfèrics canviants, des de les idees d’Urey sobre una atmosfera reductora —la mescla de metà, amoníac, hidrogen i aigua emprada originalment per Miller (1953)— fins a les composicions més compatibles amb les dades geoquímiques, és a dir, atmosferes més neutres des del punt de vista redox. Durant molts anys les simulacions que es basaven en aquestes mescles no tan reductores indicaven que la síntesi orgànica era molt escassa. Això serví de base a nombroses crítiques i als dubtes al voltant de la rellevància de la síntesi orgànica atmosfèrica i la feblesa del model oparinià (Shapiro, 1986). Alhora, també ha estimulat la cerca de fonts alternatives —en particular, la química volcànica i l’extraterrestre. Tanmateix, els resultats més recents indiquen que les atmosferes no reductores també poden ser el substrat idoni per a la generació de materials orgànics, cosa que fa una mica irrellevant el debat sobre la composició exacta de l’atmosfera primitiva en el context de les síntesis abiòtiques. En efecte, lleugeres modificacions del disseny experimental original de Miller pel que fa al control del pH del medi aquós (per evitar la forta acidificació que es produeix durant la reacció i que inhibeix la síntesi de Strecker) i a la cura en l’anàlisi dels productes (en concret, evitant la seva oxidació) han permès detectar quantitats significatives d’aminoàcids com a resultat de l’aplicació de descàrregues elèctriques en mescles d’aigua, diòxid de carboni i dinitrogen (Cleaves et al., 2008).
38 J. Peretó Taula 1. Alguns exemples de reaccions abiòtiques de possible rellevància prebiòtica Reacció
Principals productes
Síntesi de Strecker Polimerització de cianur d’hidrogen Cianoacetilè amb urea Polimerització alcalina de formaldehid (reacció de la formosa o síntesi de Butlerow) Formamida en presència de minerals de fosfat
Aminoàcids i hidroxiàcids Purines Pirimidines Sucres
Síntesi de Fischer-Tropsch Síntesi de Wieland Aminació reductiva de 2-oxoàcids catalitzada per minerals Minerals de fosfat en condicions volcàniques N-carboxianhídrids en presència de fosfat o AMP Reduccions catalitzades per Fe(II)/Ni(II)/FeS Sulfur de carbonil i aminoàcids Clorur sòdic concentrat, Cu(II) i aminoàcids Aminoàcids i nucleòsids activats en presència de montmoril·lonita Nucleòsids activats i motlles complementaris
Monòmers per a la síntesi de versions de polímers genètics Alcohols, àcids, aminoàcids, hidrocarburs alifàtics, hidrocarburs aromàtics Sucres, aminoàcids Aminoàcids Polifosfats Fosfats d’aminoacil i adenilats d’aminoacil Àcid acètic i el seu tiometilèster, amides, aminoàcids, hidroxiàcids, dipèptids Pèptids Pèptids Pèptids i oligonucleòtids Oligonucleòtids complementaris als motlles
Vegeu les referències originals a: Orgel, 2004; Pascal et al., 2006; Eschenmoser, 2007.
LA CONNEXIÓ SUBMARINA Arran de les crítiques al model basat en les síntesis abiòtiques de tipus Miller, la descoberta de les surgències hidrotermals submarines va afavorir la idea que les condicions físiques i químiques en les proximitats d’aquests llocs serien de rellevància prebiòtica (Holm i Andersson, 1995). Diversos càlculs teòrics i les simulacions experimentals (revisades a Orgel, 2004) indiquen que els gradients químics i tèrmics propis de l’activitat volcànica en el fons oceànic podrien contribuir a l’inventari de molècules orgàniques abiòtiques. Tanmateix, alguns autors han estat molt crítics amb aquest model perquè les elevades temperatures i pressions, afavoridores de químiques exòtiques, també poden suposar un perjudici fatal per
a l’estabilitat dels compostos sintetitzats. Perquè tan important com la ruta de síntesi d’una determinada espècie química és la durada d’aquesta en les condicions adients per incorporar-se a ulteriors transformacions (Miller i Lazcano, 1995). LA QUÍMICA QUE VINGUÉ DE FORA El 1961, Joan Oró va remarcar la importància d’una cosmoquímica orgànica, atesa l’abundància i diversitat de molècules d’origen extraterrestre que podrien ser rellevants per a l’origen de la vida (Oró, 1961). En efecte, en les èpoques remotes de l’emergència de la vida l’arribada a la superfície terrestre de cometes, meteorits i pols interestel· lar era molt més intensa que no actualment.
L’origen de la vida: un problema de química amb història 39
S’estima que només de pols interestel·lar en devien arribar uns 6 · 107 kg per any (Chyba i Sagan, 1992). Des dels anys seixanta, les anàlisis químiques exhaustives dels meteorits (particularment, les condrites carbonoses) han aportat un llistat creixent de tipus moleculars indicatius de la riquesa química de l’espai exterior. A banda dels materials polimèrics i insolubles, hi ha una proporció considerable d’hidrocarburs aromàtics policíclics, hidrocarburs alifàtics, àcids carboxílics, polialcohols, ful·lerens, aminoàcids, bases nitrogenades, compostos heterocíclics de nitrogen, etc., fins a més de sis-centes espècies químiques identificades (Llorca, 2004). És remarcable també la presència de molècules amfifíliques, que en medi aquós s’autoorganitzen i formen vesícules (Deamer, 1997). Una observació que ha atret l’atenció de nombrosos investigadors ha estat la troballa que, a diferència dels productes de les simulacions experimentals, les molècules identificades en mostres extraterrestres no formen mescles racèmiques (és a dir, els enantiòmers no estan en quantitats equimoleculars formant una barreja òpticament inactiva). Per bé que l’origen de l’homoquiralitat biològica continua sent un misteri, la presència d’excessos enantiomèrics en aminoàcids, genuïns i no producte de cap contaminació biològica, fa pensar en la possibilitat que la matèria orgànica extraterrestre ja portava la llavor d’una asimetria molecular. En el cas dels aminoàcids hi ha una preferència còsmica a favor de la sèrie L (Cronin i Pizzarello, 1997), la mateixa que empra la maquinària cel·lular per sintetitzar proteïnes. Es necessitarien processos d’amplificació posteriors, però s’haurien introduït condicions d’asimetria des de l’exterior del planeta que afectarien la química prebiòtica. En aquest sentit és notable l’observació de mescles no racèmiques d’aminoàcids (inspirades en les trobades als meteorits)
que condueixen a excessos enantiòmerics en els sucres derivats de la reacció de la formosa. És interessant que amb un excés a favor de l’aminoàcid L resulta un producte en què el sucre més abundant és el D (Pizzarel lo i Weber, 2004). UN MOMENT CLAU: L’ORIGEN DE LA SELECCIÓ NATURAL Les idees de Darwin i Wallace sobre la selecció natural es fonamentaven en l’observació de la natura macroscòpica i s’inspiraren en les argumentacions de Thomas R. Malthus al seu Assaig sobre el principi de la població (Costa i Peretó, 2008). La seva acció, a la natura (Grant i Grant, 2008) i al laboratori (Joyce, 2007) ha estat comprovada a bastament i podem sostenir que la selecció natural és el principal mecanisme de generació d’estructures improbables a partir del que és probable. La selecció natural es fonamenta en la imperfecció: a escala molecular això ho representa la impossibilitat que la replicació de polímers no monòtons sigui perfectament fidel. Sempre hi haurà errors introduïts en el procés de còpia o mentre els polímers persisteixen, atesa la seva estabilitat química finita. Durant l’origen de la vida, la selecció natural devia començar a operar tan aviat com fou possible la replicació molecular, com ha argumentat brillantment de Duve (2005a, b). Quins devien ser els tipus moleculars implicats? Hi ha el consens general que entre les biomacromolècules actuals la primera a aparèixer seria l’RNA, seguida per les proteïnes i, finalment, el DNA (Peretó, 2004; Pascal et al., 2006). La hipòtesi del món de l’RNA proposa una etapa evolutiva en la qual tant els polímers genètics com els executors de les activitats enzimàtiques metabòliques serien molècules de RNA, per bé que auxiliades per altres espècies quími-
40 J. Peretó
ques, com els aminoàcids o els pèptids. Hi ha força dades experimentals que donen suport a la plausibilitat química de la majoria dels postulats del model (Joyce, 2002). No obstant això, l’RNA no és una molècula prebiòticament plausible i les discussions sobre els tipus de polímers que el devien precedir romanen obertes i són un problema central de l’estudi de l’origen de la vida (Orgel, 2004; Eschenmoser, 2007). Més fàcil sembla explicar com el món de l’RNA donaria pas a les fases evolutives successives. Les principals reaccions de la síntesi proteica poden ser catalitzades per ribozims, com s’ha demostrat experimentalment (Joyce, 2002). El ribozim que, en la subunitat gran dels ribosomes actuals, catalitza la formació de l’enllaç peptídic, és el testimoni més eloqüent de com en un món de l’RNA podia emergir la síntesi de polipèptids. L’origen i evolució del codi genètic encara és un misteri, per bé que no és per falta de models hipotètics ben diversos (Pascal et al., 2006). Atès que els monòmers necessaris per a la síntesi de DNA són derivats metabòlics dels monòmers de l’RNA, resulten convincents els arguments que el DNA devia substituir l’RNA, ja que era un polímer millor adaptat a la funció genètica —és a dir, l’estabilitat química del suport del missatge genètic és major en el DNA que en l’RNA (Lazcano et al., 1988). En l’estudi dels orígens de la selecció natural ocupen un lloc privilegiat els experiments d’evolució dirigida d’àcids nucleics en el tub d’assaig, hereus dels treballs pioners de Sol Spiegelman amb el fag Qβ (Joyce, 2007). La tecnologia actual permet d’automatitzar i miniaturar els dissenys experimentals de manera que l’evolució in vitro de RNA catalítics és contínua i es poden seguir les adaptacions en temps real durant milions de generacions (Paegel i Joyce, 2008).
L’ORIGEN DEL METABOLISME I DELS COMPARTIMENTS Per a Duve (2005a) les fases més inicials de l’evolució química eren molt determinístiques, perquè la selecció de les espècies químiques devia estar controlada per la termodinàmica (és a dir, la seva estabilitat en unes determinades condicions ambientals) i la cinètica dependent de catalitzadors no biològics (p. ex., minerals presents en la Terra primitiva). La qüestió clau seria com aquest determinisme químic fou rellevat per una fase en què la selecció de polímers replicables permeté l’optimització de les funcions. Dit en altres paraules, en quin moment la química incorporà la contingència històrica en forma de genomes primordials. Aquest fou un veritable punt d’inflexió perquè un sistema químic que incorpora la memòria en forma de missatges digitals amb funcions definides i seleccionables permet la transició de la continuïtat històrica a la continuïtat genètica i expandeix l’exploració del possible. La fase protometabòlica, segons de Duve (2005a), prefiguraria químicament el metabolisme més primitiu, auxiliat ja per catalitzadors de base genètica sotmesos a selecció natural. Per tant, els metabolismes procariòtics actuals deuen contenir encara les claus dels seus orígens. Aquesta visió pressuposa l’existència d’una diversitat química extraordinària, derivada de l’activitat volcànica, els impactes d’objectes extraterrestres i les síntesis endògenes planetàries. S’ha postulat, d’altra banda, l’aparició primerenca de cicles autocatalítics impulsats geoquímicament sota condicions hidrotermals però alimentats per molècules simples com el diòxid de carboni. Així, el químic teòric Günther Wächtershäuser ha desenvolupat un model quimioautotròfic basat en la síntesi anaeròbica de pirita (Wächtershäuser, 1988) que ha
L’origen de la vida: un problema de química amb història 41
rebut un suport experimental fragmentari (revisat a Eschenmoser, 2007). Els postulats de Wächtershäuser il·lustren un aspecte més profund del debat: si l’origen de la vida devia requerir la matèria orgànica prèvia, tal i com Oparin i Haldane proposaren originalment, o si la fixació geoquímica de carboni devia ser el procés primordial. En altres paraules, què fou primer, l’heterotròfia o l’autotròfia? (Peretó, 2004). Les simulacions experimentals i les anàlisis de mostres extraterrestres ens mostren la imatge d’una Terra arcaica amb una química orgànica rica i diversa —la «sopa prebiòtica» de Haldane o el «bassalet calent» de Darwin— a partir de la qual la vida devia sorgir en forma de microorganismes primitius que consumirien matèria orgànica anaeròbicament (una mena de fermentació primordial), tant per automantenir-se com per reproduir-se. S’ha proposat que els processos químics postulats en els models autotròfics devien ser mecanismes addicionals per incrementar l’univers químic del planeta (Miller i Lazcano, 2003). La controvèrsia sobre l’emergència de la vida a partir d’un protometabolisme (és a dir, xarxes de reaccions químiques prebiòtiques emergides espontàniament) o a partir d’uns polímers genètics primitius (generats espontàniament a partir de l’heterogeneïtat química prebiòtica) és un altre dels focus dels debats (Peretó, 2004). Una visió completa de l’origen de la vida reclama explicitar la manera com el flux d’energia es devia canalitzar a través dels sistemes químics per assolir nivells d’autoorganització i complexitat creixent (Harold, 2001). Diverses consideracions teòriques (Ruiz-Mirazo et al., 2004) i argumentacions químiques (Duve, 2005a; Eschenmoser, 2007) donen suport a aquesta visió que invoca l’origen primerenc d’un protometabolisme. S’ha insistit també en la importància de l’origen dels compartiments, probablement
en forma de vesícules lipídiques molt simples (Monnard i Deamer, 2002; Peretó, 2004; Chen, 2006). Aquests compartiments no devien ser uns mers contenidors de polímers genètics, sinó que devien tenir una participació activa en els processos metabòlics i bioenergètics primordials, i constituïen una bastida fonamental de l’evolució primitiva (Deamer, 1997; Harold, 2001). Una qüestió relacionada és la naturalesa química dels compartiments: si devien ser vesícules lipídiques formades a partir de materials abiòtics d’origen terrestre o extraterrestre (Monnard i Deamer, 2002), o si els porus dins dels minerals produïts en les fonts termals submarines devien ser petits receptacles on ocorreria absolutament tota l’evolució química i bioquímica, des de la síntesi dels primers monòmers fins a l’avantpassat comú universal i la diversificació dels principals llinatges cel·lulars (Martin i Russell, 2003). De moment, les dades disponibles i un elemental principi de continuïtat donen més suport a la primera possibilitat (Peretó et al., 2004). Els resultats experimentals mostren que les vesícules d’àcids grassos de longituds moderades tenen comportaments fisicoquímics suggeridors d’un protagonisme prebiòtic que fins ara havia rebut poca atenció (Chen, 2006). Cal remarcar la capacitat estereoespecífica de les vesícules per capturar ribosa (Sacerdote i Szostak, 2005), els efectes catalítics dels minerals sobre el creixement i la divisió de vesícules amb RNA encapsulat (Hanczyc et al., 2006) i la polimerització no enzimàtica de RNA dins de les vesícules a partir de monòmers activats subministrats des del medi exterior (Mansy et al., 2008). Si quallen els esforços d’aconseguir un RNA que es copiï ell mateix —un ribozim autoreplicatiu sorgit dels experiments d’evolució dirigida—, encapsulat en vesícules lipídiques que s’autoreprodueixen, estaríem molt més a prop de simular experimental-
42 J. Peretó
ment una síntesi de vida artificial (Szostak et al., 2001). La demostració en el laboratori que la vida pot emergir a partir de l’organització de la matèria orgànica seria un assoliment científic fabulós, independentment de com ocorregué això fa quasi quatre mil milions d’anys a la Terra.
química, potser en algun «bassalet calent» del nostre planeta. Però la gran diversitat de qüestions irresoltes sobre l’origen de la vida són científicament solubles. Aquestes incògnites constitueixen l’objecte d’una investigació fascinant que Darwin no pogué ni imaginar: explorar els orígens de l’evolució biològica.
PERSPECTIVES Aquest text, necessàriament limitat, no pot tractar amb detall molts dels obstacles que encara tenim en la narració de l’origen de la vida terrestre. Per dir-ho a la manera de Darwin, cal identificar les mancances, almenys per calibrar la nostra ignorància. Malgrat els esforços continuats (vegeu la taula 1), una de les principals llacunes de la química abiòtica és encara la síntesi de monòmers en un estat d’activació i amb una estereoquímica adients per participar en processos espontanis i eficients de polimerització i replicació molecular. L’origen de l’homoquiralitat i dels primers polímers genètics, anteriors al món de l’RNA, és un camp a vessar d’interrogants. Com ho és també l’àmbit de la catàlisi mineral i el del comportament de sistemes químics complexos, especialment les vesícules lipídiques. En aquest sentit, els experiments pioners de Pier Luigi Luisi i David W. Dea mer tenen una continuïtat en l’espectacular sèrie de resultats obtinguts al laboratori de Jack W. Szostak i mostren fins a quin punt les propietats inesperades de les vesícules lipídiques ens sorprendran amb nous suggeriments de com podrien haver-se articulat en la protocèl·lula els subsistemes genètics, metabòlics i membranosos en les condicions de la Terra primitiva. La figura 1 esquematitza un resum d’aquestes idees. Atesa la seva naturalesa històrica, mai no sabrem del cert com es produí exactament la transició de la geoquímica a la bio-
Confinament en vesícules
Polímers replicables
Protometabolisme
Evolució darwiniana
Figura 1. L’origen de la vida equival a l’articulació de tres subsistemes supraquímics (o infrabiològics) en les condicions de la Terra primitiva: la membrana lipídica que confereix el confinament, la xarxa protometabòlica que canalitza la matèria i l’energia a través del sistema i els polímers replicables que donen continuïtat genètica. La conjunció dels tres permetria el començ i perpetuació de l’evolució darwiniana per selecció natural. Diversos autors proposen diferents ordres d’aparició dels subsistemes mencionats. Per exemple, els resultats de Mansy et al. (2008) afavoreixen la idea d’unes vesícules lipídiques que encapsulen polímers que es repliquen a expenses de monòmers activats d’origen abiòtic presents en el medi i que, més tard, adquiririen habilitats metabòliques (1). D’altra banda, de Duve (2005a) postula que un protometabolisme derivat de la química volcànica, atmosfèrica i còsmica quedaria confinat en vesícules lipídiques i sostindria la síntesi de polímers replicables i, per tant, l’origen de l’evolució per selecció natural (2).
L’origen de la vida: un problema de química amb història 43
BIBLIOGRAFIA Altwood, A. C.; Buech, I. W.; Walter, M. R.; Kamber, B. S. (2007). «3.43 billion-year-old stromatolite reef from Western Australia: ecosystem-scale insights to early life on earth». Precamb. Res., 158: 198-227. Brasier, M.; Green, O. R.; Jephcoat, A. P.; Kleppe, A. K.; Kranendonk, M. van; Lindsay, J. F.; Steele, A.; Grassineau, N. V. (2002). «Questioning the evidence for earth’s earliest fossils». Nature, 416: 76-79. Cleaves, H. J.; Chalmers, J. H.; Lazcano, A.; Miller, S. L.; Bada, J. L. (2008). «A reassessment of prebiotic organic synthesis in neutral planetary atmospheres». Origins Life Evol. Biosph., 38: 105-115. Costa, M.; Peretó, J. (2008). «Introducció». A: Darwin, C. R.; Wallace, A. R. La lluita per la vida. València: Publicacions de la Universitat de València. Crick, F. H. C. (1981). Life itself. Its origin and nature. Nova York: Simon and Schuster. Cronin, J. R.; Pizzarello, S. (1997). «Enantiomeric excesses in meteoritic amino acids». Science, 275: 951955. Chen, I. (2006). «The emergence of cells during the origin of life». Science, 314: 1558-1559. Chyba, C.; Sagan, C. (1992). «Endogenous production, exogenous delivery and impact-shock synthesis of organic molecules: an inventory for the origins of life». Nature, 355: 125-132. Deamer, D. W. (1997). «The first living systems: a bio energetic perspective». Microbiol. Mol. Biol. Rev., 61: 239-261. Duve, C. (2005a). Singularities. Landmarks on the pathways of life. Cambridge: Cambridge University Press. — (2005b). «The onset of selection». Nature, 433: 581582. Eschenmoser, A. (2007). «The search for the chemistry of life’s origin». Tetrahedron, 63: 12821-12844. Farley, J. (1977). The spontaneous generation controversy from Descartes to Oparin. Baltimore: The Johns Hopkins University Press. Fry, I. (1995). «Are the different hypotheses on the emergence of life as different as they seem?». Biol. Philosoph., 10: 389-417. Fry, I. (2006). «The origins of research into the origins of life». Endeavour, 30: 24-28. García-Ruiz, J. M.; Hyde, S. T.; Carnerup, A. M.; Christy, A. G.; Kranendonk, M. J. van; Welham, N. J. (2003). «Self-assembled silica-carbonate structures and detection of ancient microfossils». Science, 302: 1194-1197. Gould, S. J. (1989). Wonderful life. Nova York: W. W. Norton.
Grant, P. R.; Grant, R. (2008). How and why species multiply. The radiation of Darwin’s finches. Princeton: Princeton University Press. Gross, M. (1998). Life on the edge: amazing creatures thriving in extreme environments. Nova York: Basic Books. Haldane, J. B. S. (1929). «The origin of life». Rationalist Annu., 3-10. Trad. catalana, València: Publicacions de la Universitat de València (2006). Hanczyc, M. M.; Fujikawa, S. M.; Szostak, J. W. (2003). «Experimental models of primitive cellular compartments: encapsulation, growth, and division». Science, 302: 618-622. Harold, F. M. (2001). The way of the cell. Molecules, organisms, and the order of life. Nova York: Oxford University Press. Holm, N. G.; Andresson, E. M. (1995). «Abiotic synthesis of organic compounds under the conditions of submarine hydrothermal vents: A perspective». Planet. Space Sci., 43: 153-159. Joyce, G. F. (2007). «Forty years of in vitro evolution». Angew. Chem. Int. Ed. Engl., 46: 6420-6436. Kasting, J. F. (1993). «Earth’s early atmosphere». Science, 259: 920-926. Lazcano, A.; Guerrero, R.; Margulis, L.; Oró, J. (1988). «The evolutionary transition from RNA to DNA in early cells». J. Mol. Evol., 27: 283-290. Lazcano, A.; Miller, S. L. (1994). «How long did it take for life to begin and evolve to cyanobacteria?». J. Mol. Evol., 39: 546-554. Llorca, J. (2004). «Organic matter in meteorites». Int. Microbiol., 7: 239-248. López-García, P.; Moreira, D.; Douzery, E.; Forterre, P.; Zuilen, M. van; Claeys, P.; Prieur, D. (2006). «Ancient fossil record and early evolution (ca. 3.8 to 0.5 Ga)». Earth, Moon, Planets, 98: 247-290. Mansy, S. S.; Schrum, J. P.; Krishnamurthy, M.; Tobé, S.; Treco, D. A.; Szostak, J. W. (2008). «Template-directed synthesis of a genetic polymer in a model protocell». Nature, 454: 122-125. Martin, W.; Russell, M. J. (2003). «On the origins of cells: a hypothesis for the evolutionary transitions from abiotic geochemistry to chemoautotrophic prokaryotes, and from prokaryotes to nucleated cells». Philos. Trans. R. Soc. London Ser. B, 358: 59-83. Maurel, M.-C. (1999). August Weismann et la génération spontanée de la vie. París: Kimé. Miller, S. L. (1953). «Production of amino acids under possible primitive earth conditions». Science, 117: 528. Miller, S. L.; Lazcano, A. (1995). «The origin of life: did it occur at high temperatures?». J. Mol. Evol., 41: 689-692.
44 J. Peretó
— (2003). «La formació dels components químics de la vida». A: Homenatge a Stanley L. Miller. València: Publicacions de la Universitat de València. Monnard, P. A.; Deamer, D. W. (2002). «Membrane self-assembly processes: steps toward the first cellular life». Anat. Rec., 268: 196-207. Monod, J. (1970). Le hasard et la nécessité. París: Le Seuil. Oparin, A. I. (1924). Proiskhozhedenie Zhizni. Moscou: Moscovksii Rabotchii. Trad. catalana, València: Publicacions de la Universitat de València (2006). Orgel, L. E. (2004). «Prebiotic chemistry and the origin of the RNA world». CRC Crit. Rev. Biochem. Biol. Mol., 39: 99-123. Oró, J. (1961). «Comets and the formation of biochemical compounds on the primitive Earth». Nature, 190: 442-443. Paegel, B. M.; Joyce, G. F. (2008). «Darwinian evolution on a chip». PLoS Biol., 6: e85. Pascal, R.; Boiteau, L.; Forterre, P.; Gargaud, M.; Lazcano, A.; López-García, P.; Moreira, D.; Maurel, M.-C.; Peretó, J.; Prieur, D.; Reisse, J. (2006). «Prebiotic chemistry. Biochemistry. Emergence of life (4.4-2 Ga)». Earth, Moon, Planets, 98: 153-203. Peckham, M. (1959). Charles Darwin. The origin of species. A variorum text. Filadèlfia: University of Pennsylvania Press. Peretó, J. (2000). Què és la vida i com podem fabricar-la. Barcelona: Institut d’Estudis Catalans. — (2004). «Controversies on the origins of life». Int. Microbiol., 8: 23-31. — (2006). «Introducció». A: Oparin, A. I.; Haldane, J. B. S. L’origen de la vida. València: Publicacions de la Universitat de València. Peretó, J.; Català, J. (2007). «The Renaissance of synthetic biology». Biol. Theor., 2: 128-130. Peretó, J.; Català, J.; Moya, A. (2008). «La synthèse d’êtres vivants». Pour la Science, 60: 48-52. Peretó, J.; Lazcano, A. (2003). «Qui va cuinar la sopa? L’experiment de Miller i l’inici de la química pre biòtica» Mètode, 39: 25-28.
Peretó, J.; López-García, P.; Moreira, D. (2004). «Ancestral lipid biosynthesis and early membrane evolution». Trends Biochem. Sci., 29: 469-477. Pizzarello, S.; Weber, A. L. (2004). «Prebiotic amino acids as asymmetric catalysts». Science, 303: 1151. Ruiz-Mirazo, K.; Peretó, J.; Moreno, J. (2004) «A universal definition of life: autonomy and open-ended evolution». Origins Life Evol. Biosph. 34: 323-346. Sacerdote, M. G.; Szostak, J. W. (2005). «Semipermeable lipid bilayers exhibit diastereoselectivity favoring ribose». Proc. Natl. Acad. Sci. USA, 102: 6004-6008. Sapp, J. (2003). Genesis. The evolution of biology. Oxford: Oxford University Press. Schopf, J. W. (1993). «Microfossils of the early Archaean Apex chert: new evidence for the antiquity of life». Science, 260: 1347-1351. — (1999). Cradle of life. The discovery of Earth’s earliest fossils. Princeton: Princeton University Press. Schopf, J. W.; Kudryavtsev, A. B.; Agresti, D. G.; Wdowiak, T. J.; Czaja, A. D. (2002). «Laser-Raman imagery of Earth’s earliest fossils». Nature, 416: 7376. Shapiro, R. (1986). Origins. A skeptic’s guide to the creation of life on Earth. Nova York: Summit Books. Strick, J. E. (2000). Sparks of life. Darwinism and the Victorian debates over spontaneous generation. Cambridge: Harvard University Press. Szostak, J. W.; Bartel, D. P.; Luisi, P. L. (2001). «Synthesizing life». Nature, 409: 387-390. Tice, M. M.; Lowe, D. R. (2004). «Photosynthetic microbial mats in the 3.416-Myr-old ocean». Nature, 431: 549-552. Wächtershäuser, G. (1988). «Before enzymes and templates: theory of surface metabolism». Microbiol. Rev. 52: 452-484. Zuilen, M. A. van; Lepland, A.; Arrhenius, G. (2002). «Reassessing the evidence for the earliest traces of life». Nature, 418: 627-630.
DOI: 10.2436/20.1501.02.76
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 45-55
CÈĿLULES MÍNIMES: EVOLUCIÓ I DISSENY Rosario Gil Institut Cavanilles de Biodiversitat i Biologia Evolutiva, Departament de Genètica, Universitat de València. Adreça per a la correspondència: Rosario Gil. Institut Cavanilles de Biodiversitat i Biologia Evolutiva, Universitat de València. Apartat oficial 22085. 46071 València. Adreça electrònica: rosario.gil@uv.es. RESUM Tots els organismes vius coneguts estan formats per cèl·lules, i cadascuna d’aquestes cèl· lules emmagatzema la informació necessària per al funcionament en el seu genoma. La possibilitat d’estudiar i comparar els genomes complets de diversos organismes ens permet definir un conjunt d’informació genètica essencial per al manteniment d’una cèl·lula viva en unes condicions definides. En aquest article repassarem com l’estudi de genomes reduïts de manera natural ens permet apropar-nos a conèixer quins són els elements essencials per a la vida i com, a partir de la definició d’una cèl·lula mínima teòrica, sorgeix la possibilitat de dissenyar i fabricar noves cèl·lules semiartificials mitjançant enginyeria biològica. A més de possibles aplicacions biotecnològiques o biosanitàries, l’estudi d’aquestes noves cèl·lules mínimes ens pot ajudar a comprendre l’essència de la vida. Paraules clau: genoma mínim, cèl·lula mínima, vida, reducció genòmica, cèl·lula semisintètica. MINIMAL CELLS: EVOLUTION AND DESIGN SUMMARY All known living organisms are made of cells, and each cell stores all necessary information for its proper performance in its genome. The possibility to study and compare complete genomes from many organisms allows the characterization of a genetic core that is essential to keep a cell alive in a defined environment. In this article we analyze how the study of naturally reduced genomes has deepen our knowledge on the elements that are essential for life, and how the definition of a theoretical minimal cell can help us to design and engineer novel semiartificial cells. In additions to their potential for biotechnological
46 R. Gil
or biomedical applications, the study of such minimal cells can help us to understand the essence of life. Key words: minimal genome, minimal cell, life, genome reduction, semisynthetic cell. INTRODUCCIÓ: LA VIDA, LA CÈĿLULA, EL GENOMA La biologia és la ciència que estudia la vida. Pot semblar, doncs, sorprenent, que els biòlegs s’hagin interessat més per descriure i catalogar els éssers vius que per aprofundir en els fonaments de la vida, buscar el seu origen i definir-la. No parlarem de l’origen de la vida, però sí de la seva essència. No sembla que aquest tema preocupés excessivament Darwin, convençut que no era necessari conèixer l’essència de la vida per a l’avenç de la biologia, de la mateixa manera que no era necessari conèixer l’essència de la gravitació universal per a l’avenç de la física (Peretó, 2008). Tot i això, a ningú no se li escapava que els organismes biològics són molt complexos en realitat. Podríem dir que la cèl·lula és l’estructura de dimensions micromètriques més complexa coneguda, i encara avui dia desconeixem en gran mesura la manera com funciona: com s’estructura cadascuna de les seves parts per exercir la seva funció particular i com aquestes parts s’organitzen de manera harmonitzada per donar lloc a un organisme viu. Ja al segle xx, amb el desenvolupament de la biologia molecular, es va passar de la descripció cel·lular a la descripció molecular de la vida, i el desenvolupament de la genòmica en els darrers temps no ha fet més que reforçar aquesta visió. Els avenços tecnològics han permès l’acumulació de quantitats impressionants de dades sobre genomes complets, però el nostre coneixement sobre la vida quasi no avança. No sembla que la descripció molecular de la vida sigui prou per comprendre-la. En l’era postgenòmica, ens trobem limitats per la capacitat d’inter-
pretar aquesta gran quantitat de dades per arribar a conclusions rellevants que ens ajudin a comprendre què és la vida. Sabem que tots els organismes vius coneguts estan formats per cèl·lules. Si acceptem que la informació bàsica per donar lloc a una cèl·lula viva es troba emmagatzemada en el seu genoma, podem tractar d’apropar-nos al coneixement íntim d’una cèl·lula a través de l’estudi del seu genoma, tractant d’esbrinar quins són els elements essencials presents en tots els genomes que permeten a la cèl·lula estar viva. Però fins i tot si analitzem només la informació genètica representada pels gens codificants de proteïnes, al voltant d’un terç del gens presents en qualsevol genoma té una funció desconeguda (i el nombre s’incrementaria molt més si tenim en consideració també aquells gens per als quals només disposem d’informació poc definida sobre la seva funció), de manera que és molt difícil predir amb seguretat quines són les capacitats reals d’un organisme concret. El que sí que és cert, és que tal com acumulem dades sobre la composició dels genomes dels éssers vius, resulta més evident que totes les formes de vida sobre el nostre planeta tenen unes característiques comunes que ens poden apropar a una definició de la vida. Aquest nucli central d’informació bàsica per a la vida és el que podem anomenar genoma mínim. Però abans d’endinsar-nos en la definició d’un genoma mínim, hem de tractar de definir què és la vida, trobar una definició que ens faciliti la comprensió del fenomen de la vida per apropar-nos al seu coneixement. Podem afirmar que la vida sorgeix de l’encaixament d’elements no vius de manera apropiada en l’espai i el temps, per donar
CèĿlules mínimes: evolució i disseny 47
lloc a un sistema que presenta tres propietats fonamentals: homeòstasi, autoreproducció i evolució (Luisi et al., 2002). En els darrers anys, juntament amb la preocupació per la definició de la vida, s’ha despertat també la febre per sintetitzar-la. Aquest és un dels principals objectius de l’anomenada biologia sintètica, que pretén d’aquesta manera comprendre millor la vida i conèixer com s’han d’integrar les diferents parts que conformen una cèl·lula perquè funcioni com una entitat organitzada. Per tant, si les instruccions es troben en el DNA, necessitem primer definir aquest genoma mínim que conté totes les instruccions necessàries per posar una cèl·lula a funcionar. Una cèl· lula amb tots els seus components coneguts serà més fàcil d’estudiar, de manipular i, fins i tot, podrà servir com a recipient on es puguin afegir altres funcions addicionals que ens interessin, amb vista a aconseguir cèl·lules modificades amb utilitats biotecnològiques, biosanitàries o bioenergètiques. Sembla ciència-ficció, però no està tan lluny com podríem pensar. Per comprendre millor la dimensió d’aquest paradigma científic, cal conèixer què és una cèl·lula mínima —natural, teòrica o artificial— abans d’estudiar per a què ens pot servir. CÈĿLULES MÍNIMES NATURALS En els nostres dies, disposem de sistemes molt fiables per estimar les dimensions dels genomes, ja sigui de manera aproximada a través de tècniques electroforètiques (Riethman et al., 1997) o mitjançant la seqüenciació completa del genoma en estudi. En general, els genomes procariotes són més petits que els dels organismes eucariotes. Aquesta circumstància, sumada a l’interès que presenten molts bacteris per la seva implicació en malalties o pel seu interès biotecnològic, ha fet que en poc més
de deu anys s’hagin seqüenciat completament 686 genomes bacterians i 53 genomes d’arqueus (data obtinguda el 17 de juliol de 2008 a la base de dades GOLD, http://www. genomesonline.org/gold.cgi). Les anàlisis de les dades disponibles indiquen que, normalment, les dimensions dels genomes bacterians es correlacionen perfectament amb el nombre de gens que contenen (Casjens, 1998), de manera que genomes més grans corresponen a organismes generalistes, capaços fins i tot de certes formes de desenvolupament o amb capacitats metabòliques complexes (com és el cas de Myxococcus xanthus, amb 9,14 Mb, que presenta capacitat de formar agregats amb «motilitat social»; o Burkholderia xenovorans LB400 que, amb un genoma de 9,73 Mb de longitud, és capaç de degradar amb eficàcia els bifenils policlorats, compostos tòxics antigament emprats com a refrigerants i lubricants); els genomes més petits corresponen a organismes especialistes de dos tipus: simbionts obligats (ja siguin paràsits o mutualistes) i organismes de vida lliure adaptats a entorns oligotròfics. Els genomes microbians més petits seqüenciats es troben indicats a la taula 1. Hi trobem tant organismes autotròfics com heterotròfics, i s’observa que tots aquests genomes estan altament compactats, sense que presentin elements repetitius ni redundància gènica. L’evolució reductiva d’aquests genomes està relacionada amb la seva adaptació als nínxols ecològics que ocupen aquests bacteris i la seva dinàmica poblacional. Tots els genomes presentats a la taula 1 comparteixen una sèrie de característiques que, en conjunt, s’anomenaren síndrome del genoma resident (perquè inicialment es van descriure en bacteris que vivien a l’interior de cèl·lules eucariotes). La reducció genòmica està acompanyada d’un increment en el contingut en A + T, pèrdua de mecanismes de reparació i recombinació (excepte en el cas de l’arqueu Nanoarchaeum
48 R. Gil Taula 1. Genomes minimitzats naturals completament seqüenciats, ordenats d’acord amb la seva longitud. Dades obtingudes de GOLD
Organisme
Tipus
Ca. Carsonella ruddii1 Ca. Sulcia muelleri2 Buchnera aphidicola BCc3 Nanoarchaeum equitans Mycoplasma genitalium Ca. Vesicomyosocius okutanii Pelagibacter ubique
γ-proteobacteri Bacteroidetes γ-proteobacteri Arqueu4
Prochlorococcus marinus
Mollicutes γ-proteobacteri α-proteobacteri Cianobacteri
Estil de vida Mutualista Mutualista Mutualista Simbiont5 Paràsit Mutualista Lliure Lliure
Entorn Pachypsylla venusta Homalodisca coagulate Cinara cedri Ignicoccus sp. Homo sapiens Calyptogena okutanii Aigua marina Aigua marina
159
Gens codificants 182
Contingut en G + C (%) 16,0
245
227
22,4
420
362
20,1
490
536
31,6
580
477
31,7
1.022
976
34,0
Autòtrof
1.308
937
31,6
Autòtrof
1.657
1.717
30,8
Metabolisme
Genoma, kb
Heteròtrof Heteròtrof Heteròtrof Heteròtrof Heteròtrof Autòtrof
El seu contingut gènic sembla incompatible amb la vida; potser s’apropa més a un nou tipus d’orgànul (Tamames et al., 2007). 2 Coexisteix amb Baumannia cicadellinicola (γ-proteobacteri). 3 Coexisteix amb Serratia symbiotica (γ-proteobacteri). 4 Tot i que es va proposar que pertanyia a un nou fílum, Nanoarchaeota (Huber et al., 2002), recentment s’ha considerat que representa un llinatge relacionat amb arqueus termococcals amb acceleració evolutiva (Bro chier et al., 2005). 5 No està totalment aclarit si la relació amb l’hoste és mutualista, comensal o parasítica. 1
equitans, per al qual, a causa de la necessitat de sobreviure en un ambient hipertermofílic, aquests gens resulten essencials) i un increment en la taxa evolutiva dels gens preservats que, en alguns casos, es comporten com pseudogens (restes de gens que no donen lloc a una proteïna activa). Els estudis filogenètics demostren que els simbionts obligats deriven d’avantpassats de vida lliure amb genomes més grans (Baumann, 2005; Brochier et al., 2005; Kuwahara et al., 2007). L’adaptació a la vida a l’interior de cèl·lules hostes fa disminuir la pressió selectiva sobre gens que no són necessaris en un ambient protegit o resulten redundants, ja que l’hoste pot proveir els dos membres de la simbiosi. L’anàlisi
comparativa dels genomes d’endosimbionts ha posat de manifest que existeix un nucli de gens essencial per al manteniment de la maquinària necessària per sobreviure en simbiosi obligada, i que les diferències observades deriven de l’adequació als requeriments específics de cada tipus de simbiosi, ja sigui parasítica o mutualista i, en aquest segon cas, de les necessitats nutricionals de l’hoste i la ubicació del bacteri en les cèl· lules especialitzades (Gil et al., 2003). Els genomes més reduïts estudiats pertanyen a endosimbionts d’insectes, i els casos més extrems són els representats per Candidatus Carsonella ruddii (Nakabachi et al., 2006), Candidatus Sulcia muelleri (McCutcheon i Moran, 2007), i Buchnera aphi-
CèĿlules mínimes: evolució i disseny 49
dicola BCc (Perez-Brocal et al., 2006). Molts insectes tenen dietes restringides, nutricionalment deficients, i depenen d’aquests bacteris endosimbionts per a la síntesi d’aminoàcids essencials o vitamines per a la supervivència i l’adequada reproducció. Candidatus Carsonella ruddii (endosimbiont del psílid Pachypsylla venusta, que s’alimenta només de floema de lledoner) té un genoma de només 160 kb, molt compactat, amb pautes de lectura oberta superposades. Només cent vuitanta-dos gens codificants de proteïnes han estat proposats per a aquest genoma (Nakabachi et al., 2006). Tot i ser el genoma més petit seqüenciat, no queda clar si Ca. Carsonella ruddii és realment un bacteri o ha transferit part dels seus gens al nucli del hoste, de manera que es trobaria a mitjan camí entre una cèl·lula i un orgànul. De fet, no tots els gens essencials implicats en els processos de replicació, transcripció i traducció han pogut ser identificats en aquest genoma, i alguns dels gens implicats en la síntesi d’aminoàcids essencials (fins i tot vies metabòliques completes) estan absents (Tamames et al., 2007). Candidatus Sulcia muelleri (McCutcheon i Moran 2007), endosimbiont de l’insecte Homalodisca coagulata, que s’alimenta de xilema de diferents plantes, presenta un genoma de 245 kb amb només 227 gens codificants de proteïnes. En aquest cas, hem de considerar que l’associació simbiont és en realitat un consorci, del qual també participa un segon bacteri, Candidatus Baumannia cicadellinicola, amb 595 ORF en un genoma de 686 kb (Wu et al., 2006). L’estudi funcional dels gens presents en aquests dos genomes ha permès posar de manifest que Ca. Sulcia muelleri manté una relació més antiga amb l’hoste, i que la relació amb Ca. Baumannia cicadellinicola es va produir en el moment del canvi d’alimentació de l’avantpassat de l’insecte, d’una dieta a base de floema a una altra composta per xile-
ma (Takiya et al., 2006). L’evolució conjunta d’aquest consorci ha dut a una situació en la qual existeix una perfecta complementarietat en el subministrament d’aminoàcids i vitamines per part dels dos endosimbionts. En el cas de B. aphidicola BCc (Perez-Brocal et al., 2006), endosimbiont del pugó del cedre, també s’ha establert un consorci amb un altre bacteri, Candidatus Serratia symbiotica, per a la provisió de nutrients essencials a l’hostatger. Tot i que aquest genoma és més gran que els anteriorment descrits, cal destacar que hi ha fins a quatre genomes de diferents soques de B. aphidicola (procedents de diferents espècies de pugons) completament seqüenciats, i que la soca BCc presenta una reducció de fins a 200 kb respecte als altres tres genomes. A més, Ca. Serratia symbiotica està considerada com un simbiont facultatiu en les altres espècies de pugons, però sembla un endosimbiont obligat de Cinara cedri, el pugó del cedre. El genoma de B. aphidicola BCc, amb 420 kb i 362 gens codificants de proteïnes, en ser comparat amb el dels altres genomes de B. aphidicola ens ha permès aprofundir en l’anàlisi de la reducció dels genomes d’endosimbionts en fases avançades del procés i en les seves conseqüències evolutives i ecològiques. També els genomes del paràsits obligats pateixen el síndrome del genoma resident. El cas més notable conegut és el de Mycoplasma genitalium (Fraser et al., 1995), paràsit epicel·lular humà causant d’infeccions de transmissió sexual. El seu genoma de 580 kb va ser el segon genoma bacterià seqüenciat i encara és el genoma més petit conegut d’un organisme que pot ser cultivat en el laboratori. Altres casos estudiats amb genomes no tan reduïts (tot i que encara pel voltant d’1 Mb) corresponen a bacteris autòtrofs mutualistes obligats, capaços d’aportar quasi tots els nutrients necessaris al seu hoste. En aquesta circumstància trobem
50 R. Gil
Candidatus Ruthia magnifica (Newton et al., 2007) i Candidatus Vesicomyosocius okutanii (Kuwahara et al., 2007), endosimbionts de mol·luscs del gènere Calyptogena, que habiten les profunditats marines. Aquests bacteris són capaços de fixar CO2 emprant electrons procedents del H2S i tenen el potencial de sintetitzar pràcticament totes les biomolècules essencials per als seus hostes. A canvi, les cèl·lules especialitzades del mol· lusc que contenen els bacteris (bacteriòcits) estan situades entre les cèl·lules epitelials branquials i el sistema circulatori, i eviten que el H2S i el nitrogen o oxigen reaccionin espontàniament, per tal de poder-los emprar com a donants i receptors d’electrons, respectivament, una situació que no podria donar-se de manera simultània en una cèl· lula de vida lliure. També en organismes de vida lliure pot donar-se un fenomen de minimització genòmica similar al descrit en endosimbionts. És el cas de bacteris que viuen de manera independent formant grans poblacions en ambients oligotròfics, en què el procés selectiu d’adaptació a un ambient pobre en nutrients afavoreix l’aparició d’organismes amb una maquinària cel·lular reduïda i un augment de la relació superfície-volum per tal d’economitzar recursos. Bacteris fotòtrofs marins com Prochlorococcus marinus (cianobacteri) i Pelagibacter ubique (α-proteobacteri) es troben entre els organismes més abundants al nostre planeta i presenten genomes del voltant d’1 Mb, similars, per tant, als de bacteris endosimbionts autòtrofs. Diversos genomes de diferents ecotipus de Prochlorococcus han estat seqüenciats (Dufresne et al., 2003; Hess, 2004; Rocap et al., 2003), i mostren una gran variabilitat, fet que indica una gran capacitat per modificar-se en funció de l’ambient. L’ecotip MED4 de P. marinus, adaptat a l’elevada intensitat lumínica de la superfície dels oceans, presenta el genoma més petit descrit
per a aquesta espècie autòtrofa (1,66 Mb). Però el genoma més petit conegut per a un ésser viu capaç de viure independentment correspon a P. ubique, un bacteri fotoheterotròfic pertanyent a l’abundant clade SAR11 (Morris et al., 2002), amb només 1,308 Mb i un conjunt de 1.354 gens codificants de proteïnes (Giovannoni et al., 2005). L’existència d’aquests genomes reduïts en la natura ens planteja una qüestió: si els organismes que els posseeixen han pogut prescindir de part dels genomes ancestrals, és que aquestes parts no eren essencials per a la vida; com podria ser, doncs, una cèl·lula mínima? Quin seria el genoma mínim, és a dir, el conjunt mínim de gens capaç de sustentar una forma de vida en condicions controlades (absència d’estrès i medi nutricionalment ric)? (Koonin, 2000). La resposta a aquesta pregunta que, en definitiva, ens apropa un poc més a conèixer l’essència de la vida, s’ha abordat de diferents maneres, que passem a analitzar a continuació. CÈĿLULES MÍNIMES TEÒRIQUES Els espectaculars avenços de la genòmica en els darrers temps estan permetent que cada dia coneguem més i més genomes complets d’organismes. Podem aprofundir en el coneixement de quins gens són essencials per al sosteniment d’una cèl·lula viva per comparació del genomes coneguts, ja que les funcions essencials han d’estar representades en tots els organismes. Aquesta aproximació comparada és especialment útil en bacteris, no sols a causa de l’elevat nombre de genomes disponibles, sinó també al fet que la majoria de les proteïnes bacterianes s’han mantingut suficientment conservades al llarg de l’evolució per permetre predir la funció d’una proteïna desconeguda codificada en un genoma d’un bacteri poc caracteritzat d’acord amb la similitud
CèĿlules mínimes: evolució i disseny 51
amb proteïnes perfectament caracteritzades procedents d’organismes model ben estudiats genèticament i bioquímicament. Tot i això, una vegada identificada la funció teòrica de totes les proteïnes codificades en un genoma, s’haurien de procedir a identificar no sols els gens comuns als diferents genomes comparats, sinó també quines són les funcions comunes, ja que és possible que proteïnes diferents, amb orígens diferents (proteïnes no ortòlogues), tinguin una mateixa funció, i són realment les funcions, i no les proteïnes concretes, les que són imprescindibles per al funcionament correcte de la cèl·lula. Finalment, l’única forma d’esbrinar si realment un gen (i, per tant, la funció que exerceix el seu producte proteic) és essencial, seria comprovant-ho experimentalment: l’eliminació, interrupció o silenciament d’un gen essencial serà incompatible amb la vida. D’acord amb aquests principis, hi ha dues maneres bàsiques d’aproximarnos al concepte de cèl·lula mínima (posseïdora d’un genoma mínim): de manera computacional i experimental. La combinació d’ambdues ha estat molt útil en la definició d’un hipotètic genoma mínim teòric. La primera aproximació al genoma mínim amb genòmica comparada va ser realitzada quan van ser seqüenciats els dos primers genomes bacterians (Mushegian i Koonin, 1996). Els genomes corresponien a Haemophilus influenzae i Mycoplasma genitalium, dos patògens humans amb genomes naturalment reduïts, a causa de la seva forma de vida parasítica, i molt allunyats filogenèticament. La hipòtesi de partida era que els gens conservats entre dues formes de vida que han patit una evolució reductiva independent haurien de ser essencials i totes les funcions essencials devien estar compartides. El resultat va ser la proposta d’un conjunt mínim format per 256 gens, la majoria dels quals estan implicats en l’emmagatzemament i processament de la informació
genètica, el processament i manteniment de proteïnes funcionals i unes capacitats metabòliques molt limitades. Moltes altres anàlisis comparatives s’han fet des d’aquell moment (revisades per Carbone, 2006), però el sistema té algunes limitacions: resulta complicat reconèixer els veritables casos de desplaçaments no ortòlegs (proteïnes no ortòlogues amb la mateixa funció) i, com que no disposem d’informació de quasi un terç dels gens representats en un genoma, fins i tot el conjunt mínim proposat conté gens de funció desconeguda. D’altra banda, la majoria dels conjunts mínims proposats d’acord amb estudis comparatius està principalment format per gens implicats en funcions per a les quals no hi ha alternativa en la natura (un bon percentatge dels quals està implicat en la complexa maquinària de traducció, incloent-hi els ribosomes), però contenen xarxes metabòliques deficients que no serien compatibles amb el manteniment d’una cèl·lula viva. Això és degut al fet que hi ha molts metabolismes possibles, depenent de les disponibilitats d’energia i nutrients de l’entorn, de manera que cap de les possibles formes de metabolisme està completament conservada. Una aproximació alternativa amb base genètica consisteix a identificar quins són els gens essencials per al manteniment d’una cèl·lula viva de manera experimental. Estudis d’inactivació de gens a gran escala s’han realitzat amb diferents organismes model, emprant diferents estratègies que van des de la inactivació sistemàtica de gens, l’ús massiu d’elements transposables o la utilització de RNA antisentit per inhibir l’expressió gènica (revisats a Feher et al., 2007; Reznikoff i Winterberg, 2008). Però, una vegada més, existeixen limitacions. A banda de falsos positius (gens considerats essencials que només retarden el creixement sense impedir-lo) i negatius (gens essencials que poden permetre interrupcions en zones no
52 R. Gil
vitals per a la proteïna codificada o poden funcionar amb una expressió residual), una de les principals limitacions és que la inactivació d’un gen individual no permet identificar funcions essencials codificades per gens redundants, i alguns gens que poden ser eliminats individualment poden no ser simultàniament dispensables. De manera que, en general, el conjunt de gens essencials determinats d’aquesta manera sol ser només un subconjunt dels gens que hauria de contenir un genoma mínim. És possible apropar-nos un poc més al contingut gènic d’un hipotètic genoma mínim si combinem totes les estratègies anteriors i tractem de donar un sentit coherent al metabolisme mínim que s’inferiria de l’esmentat genoma. Aquesta va ser l’aproximació emprada pel nostre grup (Gil et al., 2004) per proposar un genoma mínim teòric compost per dos-cents vuit gens, seixanta-dos dels quals estan implicats en el metabolisme cel·lular formant una xarxa metabòlica amb unes propietats topològiques i estequiomètriques coherents (Gabaldon et al., 2007). En qualsevol cas, sembla segur que es podrien proposar diferents genomes mínims basats en les funcions definides com a essencials per a una cèl·lula moderna, en la qual dos terços del genoma estarien dedicats a processos informàtics (replicació, transcripció, traducció i manteniment de proteïnes funcionals) i serien constants, amb un terç de gens implicats en el metabolisme, variables en funció de les condicions de l’entorn. Una altra via possible per definir el contingut gènic d’un hipotètic genoma mínim seria partir de la definició prèvia de les funcions essencials, buscant el mínim complement bioquímic capaç de realitzar-les, encara que el conjunt definit així no s’hagi trobat mai en una cèl·lula moderna coneguda (Forster i Church, 2006). Aquest sistema «modular» per determinar el contingut d’un genoma mínim té l’avantatge que cap
dels gens considerats com a integrants de l’hipotètic genoma mínim tindria una funció desconeguda, de manera que totes les capacitats del sistema serien conegudes a priori. D’altra banda, cadascun dels mòduls funcionals pot haver estat analitzat prèviament per comprovar el seu funcionament independent, de manera que només faltaria comprovar que el conjunt és capaç de combinar-se per treballar com una entitat organitzada. L’aproximació bioquímica de Foster i Church (2006) els portà a definir un genoma mínim compost per només cent cinquanta-un gens. Cal considerar que els autors assumeixen que tots els nutrients i l’energia han de ser aportats per l’entorn (i, per tant, no cal incloure gens implicats en el metabolisme), i que el sistema pot estar contingut en una vesícula lipídica generada espontàniament en un entorn amb molècules amfilítiques. Tot i que aquestes assumpcions estan lluny de ser demostrades, i que queden altres reptes per resoldre abans que siguem capaços de sintetitzar un sistema d’aquestes característiques, el pla per dur el projecte a la pràctica (Forster i Church, 2007) ens deixa molt a prop de la síntesi d’una veritable cèl·lula viva artificial. CÈĿLULES MÍNIMES (QUASI) SINTÈTIQUES Sembla, per tant, que la síntesi d’un sistema dotat de les propietats que li confereixen la propietat d’estar viu no és un objectiu impossible. A més, un sistema dotat d’un genoma mínim en el qual tots els components tinguin una funció coneguda i essencial podria ser la millor manera d’aproparnos al coneixement de les característiques d’aquest sistema viu, capaç d’automantenirse, reproduir-se i evolucionar. A banda del sistema dissenyat per Foster i Church (2006), que ens portaria a una
CèĿlules mínimes: evolució i disseny 53
forma de vida completament diferent de les que ja coneixem (tot i que inspirada en aquesta), hi ha dues possibles aproximacions a un genoma mínim mitjançant la manipulació de cèl·lules ja existents: eliminant les parts no essencials de genomes més grans o introduint un genoma sintètic en una cèl·lula a la qual prèviament se li ha eliminat el genoma propi. La minimització de genomes naturals ha estat una estratègia molt emprada en els darrers anys. Els genomes d’organismes models com Escherichia coli, Bacillus subtilis o M. genitalium (que ja abans de la reducció addicional presenta el genoma més petit conegut per a un bacteri amb capacitat de vida autònoma) o el d’organismes d’interès biotecnològic com Corynebacterium glutamicum, han estat sotmesos a diferents experiments orientats a eliminar aquelles parts del genoma que no semblen essencials (revisats a Feher et al., 2007). Per acomplir aquest objectiu, és convenient determinar primer quines són les regions que poden ser prescindibles (com ara, aquelles que són producte de transferència horitzontal, bacteriòfags, plasmidis conjugatius o elements transposables). Una vegada identificades, existeixen diferents mètodes que ens permeten l’eliminació de les regions seleccionades, mitjançant l’ús de plasmidis o DNA lineal, combinats amb la utilització de recombinases específiques de lloc o transposons. Seguint aquests procediments, ha estat possible reduir el genoma d’E. coli entre un 15,3 % i un 21 % per aconseguir noves soques que presenten, fins i tot, algunes propietats millorades (Mizoguchi et al., 2007; Posfai et al., 2006). En situacions més extremes, quan el genoma d’E. coli es va reduir en quasi un 30 % (Hashimoto et al., 2005), van aparèixer efectes negatius, com són una morfologia cel·lular aberrant o la reducció de la taxa de creixement, tot i que la nova soca amb el genoma
així reduït s’havia obtingut per combinació de delecions en sèrie de regions prèviament eliminades sense efectes adversos. És a dir, superat un cert límit (que no està ben definit) l’eliminació de regions genòmiques teòricament prescindibles resulta nociva per a la cèl·lula. Potser l’arquitectura del cromosoma, l’existència d’una certa forma de connexió encara no ben coneguda entre les diferents parts del genoma d’una cèl·lula real, estigui implicada en aquesta dificultat per eliminar de manera seriada fragments cada vegada més llargs de genoma. Una altra possibilitat per arribar a aconseguir un genoma mínim seria sintetitzarlo de novo i introduir-lo després a l’interior d’un compartiment cel·lular ja existent. El que fa uns anys hagués resultat impensable, és avui dia una tasca abordable. La tecnologia disponible actualment per a la síntesi de llargs fragments de DNA és suficient per permetre la síntesi de genomes petits amb suficient fiabilitat i amb un preu cada vegada més assequible. De fet, s’ha passat en pocs anys de la capacitat de sintetitzar un genoma víric viable (Cello et al., 2002) a la síntesi de mòduls genètics complets (Kodumal et al., 2004) i, a principis de 2008, a la síntesi completa del genoma de M. genitalium (Gibson et al., 2008). Introduir un genoma de DNA nu dins una cèl·lula també ha estat una tasca aconseguida recentment pel grup de C. J. Venter (Lartigue et al., 2007), una vegada més aprofitant les peculiars característiques dels micoplasmes, amb genomes reduïts i sense paret cel·lular. Tot i això, no queda clar com el genoma original de la cèl·lula emprada com a receptora va deixar pas al nou genoma trasplantat, de manera que no és possible saber si l’experiment funcionaria en altres circumstàncies, amb un altre tipus de bacteri receptor o amb un DNA sintètic.
54 R. Gil
COMENTARI FINAL: ENGINYERIA BIOLÒGICA AMB CÈĿLULES MÍNIMES La possibilitat de sintetitzar cèl·lules mínimes dotades de vida no sembla un objectiu llunyà. Aquestes cèl·lules ens ajudaran sens dubte a conèixer amb més profunditat l’essència de la vida, a través de l’estudi del fenomen d’una manera simplificada i controlada, per adquirir un millor coneixement de com funcionen els sistemes cel·lulars integrant cadascun dels seus components. Però podem (i sens dubte és un dels reptes de la biologia del futur) anar un pas més enllà. Podem emprar aquestes noves cèl·lules simplificades com a contenidors per fer enginyeria biològica i dotar el sistema de les propietats que ens interessin (Andrianantoandro et al., 2006; Drubin et al., 2007; Isalan et al., 2008; Serrano, 2007). Podem fabricar cèl·lules que tinguin aplicacions en el camp de la bioremediació, la biomedicina o la fabricació de biocombustibles més ecològics i sense dependre de fonts esgotables, per exemple. Podem crear noves formes de vida. Fins i tot podem modificar el codi genètic per poder introduir nous aminoàcids en les proteïnes, i dotar-les de noves propietats (Drubin et al., 2007). Però potser tot això forma part d’una altra història que encara estem començant a escriure. Una història que, sens dubte, hauria semblat de ciència-ficció al nostre benvolgut Charles Darwin. AGRAÏMENTS Vull donar les gràcies a A. Navarro per donar-me l’oportunitat de participar en aquest projecte d’homenatge a Darwin; a J. Peretó, A. Latorre i A. Moya per ajudarme a posar en ordre les meves idees sobre el tema i per la fantàstica atmosfera de treball i discussió científica que es respira al
Grup de Genètica Evolutiva de l’ICBiBE. El treball ha estat finançat amb projectes del MEC (BFU2005-03477/BMC) i la Generalitat Valenciana (GV/2007/050). BIBLIOGRAFIA Andrianantoandro, E.; Basu, S.; Karig, D. K.; Weiss, R. (2006). «Synthetic biology: New engineering rules for an emerging discipline». Mol. Syst. Biol., 2: 2006-2008. Baumann, P. (2005). «Biology bacteriocyte-associated endosymbionts of plant sap-sucking insects». Annu. Rev. Microbiol., 59: 155-189. Brochier, C.; Gribaldo, S.; Zivanovic, Y.; Confalonieri, F.; Forterre, P. (2005). «Nanoarchaea: Representatives of a novel archaeal phylum or a fast-evolving euryarchaeal lineage related to thermococcales?». Genome Biol., 6: R42. Carbone, A., (2006). «Computational prediction of genomic functional cores specific to different microbes». J. Mol. Evol., 63: 733-746. Casjens, S., (1998). «The diverse and dynamic structure of bacterial genomes». Annu. Rev. Genet., 32: 339-377. Cello, J.; Paul, A. V.; Wimmer, E. (2002). «Chemical synthesis of poliovirus cDNA: Generation of infectious virus in the absence of natural template». Science, 297: 1016-1018. Drubin, D. A.; Way, J. C.; Silver, P. A. (2007). «Designing biological systems». Genes Dev., 21: 242-254. Dufresne, A.; Salanoubat, M.; Partensky, F. [et al.] (2003). «Genome sequence of the cyanobacterium Prochlorococcus marinus SS120, a nearly minimal oxyphototrophic genome». Proc. Natl. Acad. Sci. USA, 100: 10020-10025. Feher, T.; Papp, B.; Pal, C.; Posfai, G. (2007). «Systematic genome reductions: Theoretical and experimental approaches». Chem. Rev., 107: 3498-3513. Forster, A. C.; Church, G. M. (2006). «Towards synthesis of a minimal cell». Mol. Syst. Biol., 2: 45. — (2007). «Synthetic biology projects in vitro». Genome Res., 17: 1-6. Fraser, C. M.; Gocayne, J. D.; White, O. [et al.] (1995). «The minimal gene complement of Mycoplasma genitalium». Science, 270: 397-403. Gabaldon, T.; Pereto, J.; Montero, F. [et al.] (2007). «Structural analyses of a hypothetical minimal metabolism». Philos. Trans. R. Soc. Lond. B Biol. Sci., 362: 1751-1762. Gibson, D. G.; Benders, G. A.; Andrews-Pfannkoch,
CèĿlules mínimes: evolució i disseny 55
C. [et al.] (2008). «Complete chemical synthesis, assembly, and cloning of a Mycoplasma genitalium genome». Science, 319: 1215-1220. Gil, R.; Silva, F. J.; Pereto, J.; Moya, A. (2004). «Determination of the core of a minimal bacterial gene set». Microbiol. Mol. Biol. Rev., 68: 518-537. Gil, R.; Silva, F. J.; Zientz, E. [et al.] (2003). «The genome sequence of Blochmannia floridanus: Comparative analysis of reduced genomes». Proc. Natl. Acad. Sci. USA, 100: 9388-9393. Giovannoni, S. J.; Tripp, H. J.; Givan, S. [et al.] (2005). «Genome streamlining in a cosmopolitan oceanic bacterium». Science, 309: 1242-1245. Hashimoto, M.; Ichimura, T.; Mizoguchi, H. [et al.] (2005). «Cell size and nucleoid organization of engineered Escherichia coli cells with a reduced genome». Mol. Microbiol., 55: 137-149. Hess, W. R. (2004). «Genome analysis of marine photosynthetic microbes and their global role». Curr. Opin. Biotechnol., 15: 191-198. Huber, H.; Hohn, M. J.; Rachel, R. [et al.] (2002). «A new phylum of archaea represented by a nanosized hyperthermophilic symbiont». Nature, 417: 63-67. Isalan, M.; Lemerle, C.; Michalodimitrakis, K. [et al.] (2008). «Evolvability and hierarchy in rewired bacterial gene networks». Nature, 452: 840-845. Kodumal, S. J.; Patel, K. G.; Reid, R. [et al.] (2004). «Total synthesis of long DNA sequences: Synthesis of a contiguous 32-kb polyketide synthase gene cluster». Proc. Natl. Acad. Sci. USA, 101: 15573-15578. Koonin, E. V. (2000). «How many genes can make a cell: The minimal-gene-set concept». Annu. Rev. Genomics Hum. Genet., 1: 99-116. Kuwahara, H.; Yoshida, T.; Takaki, Y. [et al.] (2007). «Reduced genome of the thioautotrophic intracellular symbiont in a deep-sea clam, Calyptogena okutanii». Curr. Biol., 17: 881-886. Lartigue, C.; Glass, J. I.; Alperovich, N. [et al.] (2007). «Genome transplantation in bacteria: Changing one species to another». Science, 317: 632-638. Luisi, P. L.; Oberholzer, T.; Lazcano, A. (2002). «The notion of a DNA minimal cell: a general discourse and some guidelines for an experimental approach». Helv. Chim. Acta, 85: 1759-1777. McCutcheon, J. P.; Moran, N. A. (2007). «Parallel genomic evolution and metabolic interdependence in an ancient symbiosis». Proc. Natl. Acad. Sci. USA, 104: 19392-19397. Mizoguchi, H.; Mori, H.; Fujio, T. (2007). «Escherichia coli minimum genome factory». Biotechnol. Appl. Biochem., 46: 157-167.
Morris, R. M.; Rappe, M. S.; Connon, S. A. [et al.] (2002). «SAR11 clade dominates ocean surface bacterioplankton communities». Nature, 420: 806-810. Mushegian, A. R.; Koonin, E. V. (1996). «A minimal gene set for cellular life derived by comparison of complete bacterial genomes». Proc. Natl. Acad. Sci. USA, 93: 10268-10273. Nakabachi, A.; Yamashita, A.; Toh, H. [et al.] (2006). «The 160-kilobase genome of the bacterial endosymbiont Carsonella» Science, 314: 267. Newton, I. L.; Woyke, T.; Auchtung, T. A. [et al.] (2007). «The Calyptogena magnifica chemoautotrophic symbiont genome». Science, 315: 998-1000. Peretó, J. (2008). «Sobre la naturaleza y la fabricación de seres vivos» Apuntes de CyT, 27: 30-38. Perez-Brocal, V.; Gil, R.; Ramos, S. [et al.] (2006). «A small microbial genome: The end of a long symbiotic relationship?». Science, 314: 312-313. Posfai, G.; Plunkett, G. III; Feher, T. [et al.] (2006). «Emergent properties of reduced-genome Escherichia coli». Science, 312: 1044-1046. Reznikoff, W. S.; Winterberg, K. M., (2008) «Transposon-based strategies for the identification of essential bacterial genes». A: Osterman, A. L.; Gerdes, S. Y. [ed.]. Microbial gene essentiality: Protocols and bioinformatics. Totowa: Humana Press, 13-26. Riethman, H.; Birren, B.; Gnirke, A. (1997). «Preparation, manipulation, and mapping of high molecular weight DNA». A: Birren, B.; Green, E. D.; Klapholz, S.; Myers, R. M.; Roskam, J. [ed.]. Genome analysis: A laboratory manual. Vol. 1. Analyzing DNA. Cold Spring Harbor: Cold Spring Harbor Laboratory Press, 83-248. Rocap, G.; Larimer, F. W.; Lamerdin, J. [et al.] (2003). «Genome divergence in two prochlorococcus ecotypes reflects oceanic niche differentiation». Nature, 424: 1042-1047. Serrano, L. (2007). «Synthetic biology: Promises and challenges». Mol. Syst. Biol., 3: 158. Takiya, D. M.; Tran, P. L.; Dietrich, C. H.; Moran, N. A. (2006). «Co-cladogenesis spanning three phyla: Leafhoppers (insecta, Hemiptera, Cicadellidae) and their dual bacterial symbionts». Mol. Ecol., 15: 4175-4191. Tamames, J.; Gil, R.; Latorre, A. [et al.] (2007). «The frontier between cell and organelle: Genome analysis of Candidatus Carsonella ruddii». BMC Evol. Biol., 7: 181. Wu, D.; Daugherty, S. C.; Aken, S. E. van [et al.] (2006). «Metabolic complementarity and genomics of the dual bacterial symbiosis of sharpshooters». PLoS Biol., 4: e18.
DOI: 10.2436/20.1501.02.77
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 57-80
ESTRUCTURA DEL GENOMA Tomàs Marquès-Bonet 1 i Lluís Armengol 2 Department of Genome Sciences, Universitat de Washington. Genes and Disease Program, Centre de Regulació Genòmica i Quantitative Genomic Medicine Laboratories (qGenomics).
1 2
Adreces per a la correspondència. Tomàs Marquès-Bonet. Department of Genome Sciences, Universitat de Washington. Foege Building S-250, Box 355065. 1705 NE Pacific St. Seattle WA 98195-5065 (EUA). Adreça electrònica: tmarques@u.washington.edu. Lluís Armengol i Dulcet. Quantitative Genomic Medicine Laboratories. Parc de Recerca Biomèdica de Barcelona, Planta 4. Despatx 423. Dr. Aiguader, 88. 08003 Barcelona. Adreça electrònica: lluis.armengol@qgenomics.com. RESUM El genoma és una estructura altament dinàmica amb una certa tendència a la inestabilitat, i està, per tant, subjecte a l’escrutini de la selecció natural. En el camí d’entendre el genoma hem pogut observar el paper clau que tenen les repeticions (de tota mena) per comprendre l’evolució estructural del genoma humà i com es relaciona l’estructura i la funció. Així, recentment, hem pogut apreciar que, a part de les variacions clàssiques i els SNP (polimorfismes d’un sol nucleòtid), els mamífers (com a mínim els ratolins i els humans) tenim una estructura dels nostres genomes altament variable. L’estudi de les regions variants en nombre de còpia (structural variants o copy number polymorphism) ens ha permès observar que els canvis en l’estructura tenen repercussió en l’expressió dels gens, que es tradueixen tant en variabilitat fenotípica entre individus com, en casos més extrems, en malalties. En aquest capítol donarem una visió sobre l’estructura i el dinamisme del genoma, centrantnos en aspectes evolutius del polimorfisme humà i la malaltia. Paraules clau: genoma, repeticions comunes, variants estructurals (SV), duplicacions segmentàries (DS), variants de nombre de còpia (CNV). GENOME STRUCTURE SUMMARY Every mammalian genome is an unstable and highly dynamic structure and therefore subjected to the strict evaluation of natural selection. In the last decades, we have changed
58 T. Marquès-Bonet i L. Armengol
our vocabulary and we have been using genomics instead of genetics, mainly because of the revolution on our research techniques. In the way of the understanding of the genomes, we realized how important repeats are and their role in the evolution of the structure of the human genome and how this structure and different functions are related. We have seen for instance that besides of the variation caused for SNPs (Single Nucleotide Polymorphism), the mammals (and specifically humans) are highly structural variant. The study of SVs (Structural Variant regions) and CNPs (Copy Number Polymorphisms) has allowed us to see that changes in structure have important consequences, from genomic diseases to simply affecting genes and its expression and hence, being responsible of the huge phenotypical variability observed among individuals. In this chapter, we will give our view on the structure and dynamism of the genome, from an evolutionary point of view, covering human polymorphism and diseases. Key words: genome, common repeats, structural variants (SVs), segmental duplications (SDs), copy number polymorphism (CNVs). INTRODUCCIÓ Charles Darwin desconeixia les paraules genoma, gen o cromosoma. Nosaltres, per contra, estem familiaritzats des de fa gairebé dos segles amb el terme genètica, entesa com la ciència de l’herència o la branca de la biologia que es dedica a l’estudi de l’herència, tot fent èmfasi en l’estructura i funció dels gens i en com aquests es transmeten d’una generació a la següent. D’alguna o altra manera hem estat utilitzant la genètica des que els nostres avantpassats van abandonar la caça com a base del seu modus vivendi i van començar a socialitzar-se i a escollir les variants de plantes més productives i els animals més manyacs per fer-los companyia. Tot i així, no vam ser-ne plenament conscients com a científics fins que, a principis del segle xix i després d’anys d’oblit, es van popularitzar els treballs sobre l’herència de la planta del pèsol, del monjo austríac Gregor Mendel. El seu coetani, Charles Darwin, amb la seva teoria sobre l’origen de les espècies, també fonamentava llavors una de les teories més acceptades en la biologia moderna, encara que sense el coneixement de la genètica (fusió que arribaria unes dècades més tard en el que es va ano-
menar la teoria sintètica de l’evolució). Sense ser-ne gaire conscients, ambdós van donar un nou sentit al món en què vivien en establir les bases de l’herència i el motor de l’evolució. Malgrat tot, aquests experiments només van representar les primeríssimes passes conscients envers un coneixement que s’ha desenvolupat de manera vertiginosa en les dues darreres dècades i que, de la mà de la revolució tecnològica, suposa una empenta sense precedents per a l’avenç no solament de la biologia, sinó també de camps tan aparentment allunyats com l’enginyeria, l’economia o la medicina. PERSPECTIVA HISTÒRICA I DESENVOLUPAMENT TECNOLÒGIC La rellevància que ha tingut i té la genètica per al coneixement de la humanitat i la seva vida pràctica s’ha vist traduïda en molts reconeixements en forma de premis Nobel a investigadors que han contribuït de manera decisiva a l’avenç d’aquest camp. El desenvolupament de la genètica ha estat estretament lligat a l’avenç d’altres branques del coneixement, essencialment la física i
Estructura del genoma 59
la química en els seus inicis, de les quals els científics van prendre coneixements per resoldre els problemes biològics que se’ls plantejaven. Després d’una etapa d’evolució «pròpia», en què la biologia i la genètica molecular van evolucionar per se, fa algun temps que la gran quantitat de dades generades han obligat els genètics a valdre’s d’altres branques del coneixement per avançar. Som en l’era de la bioinformàtica... Van haver de passar més de vint-i-cinc anys des de la primera observació documentada al microscopi d’unes estructures que es tenyien amb colorants durant la mitosi, que en Walter Fleming va anomenar cromosomes (1882), fins que es va emprar el terme gen per referir-se a les unitats d’herència descrites per Mendel. Utilitzant mosques del vinagre com a organisme model, Thomas Hunt Morgan i els seus estudiants van demostrar que els gens, alineats en els cromosomes, són les unitats bàsiques de l’herència, van descobrir el lligament genètic i van descriure el procés de recombinació cromosòmica (Morgan, 1915) principis essencials per al posterior desenvolupament de la genètica mèdica. El 1944, Avery, McLeod i McCarty van demostrar que una molècula d’alt pes molecular, rica en àcids nucleics, que no era ni l’RNA, ni les proteïnes ni els lípids, era el principi transformant, capaç de convertir les soques R no virulentes de Streptococcus pneumoniae en soques S virulentes. Que els gens estaven formats majoritàriament per àcid desoxiribonucleic (DNA) tampoc no va ferse evident fins algun temps després, quan Hershey i Chase, sabent que el DNA era ric en fòsfor i no tenia sofre, i que les proteïnes eren riques en sofre però no tenien fòsfor, van emprar la microscòpia electrònica i medis radioactius per demostrar que el bacteriòfag T4 només utilitza molècules riques en fòsfor per infectar el seu hoste (Her shey i Chase, 1952). Un any després, Watson
i Crick publicarien el treball que descrivia l’estructura de doble hèlix de la molècula de DNA (Watson i Crick, 1953). En els anys posteriors els avenços en genètica van començar a ser vertiginosos: el descobriment d’enzims capaços de replicar el DNA, el descobriment del nombre de cromosomes humans i les primeres relacions entre malalties i alteracions en el material genètic. Els anys seixanta van estar marcats pel descobriment de l’àcid ribonucleic (RNA) com a «transmissor» de la informació genètica per mitjà del codi genètic. En els anys setanta es van identificar els primers enzims de restricció, es van produir les primeres molècules de DNA recombinant i es va descriure la tecnologia Sanger per obtenir la seqüència de nucleòtids del DNA. A principis dels vuitanta es van generar els primers ratolins i mosques transgèniques, es va mapar el primer gen causant d’una malaltia, la corea de Huntington (Gusella, et al., 1983), i es va descriure la tecnologia de la reacció en cadena de la polimerasa (PCR). L’any 1987 es va obtenir el primer mapa genètic, basat en polimorfismes de longitud de fragments de restricció (de l’anglès restriction fragment length polymorphism o RFLP) i el 1989 es van descriure els microsatèl·lits, utilitzats a bastament per construir mapes genètics que permetrien el clonatge posicional de nombrosos gens causants de malalties. A principis dels noranta, la popularització de les tecnologies de seqüenciació permeté desxifrar els primers genomes bacterians. La posada a punt de metodologies per clonar fragments de genoma humà en vectors de llevat i de bacteris (YAC i BAC, respectivament), juntament amb l’evolució de tecnologies de biologia molecular aplicades a la microscòpia (hibridació in situ fluorescent o FISH, de l’anglès fluorescent in-situ hybridization) permeten plantejar l’elaboració de mapes genètics detallats del genoma humà i, eventualment, l’obtenció de
60 T. Marquès-Bonet i L. Armengol
la seqüència completa de diferents organismes. L’any 1996 es completa el primer mapa de gens del genoma humà i un consorci internacional comença la seqüenciació massiva d’aquest genoma (l’anomenat Projecte Genoma Humà) i el 1998, l’empresa privada Celera Genomics anuncia (i s’entén com una amenaça) que persegueix el mateix objectiu. A finals de 1999, es publica la seqüència completa del primer cromosoma humà (el vint-i-dos). El 2000 és l’any del cromosoma 21, i de la seqüenciació dels genomes de dos dels organismes model més utilitzats en genètica, Drosophila i Arabidopsis. La carrera entre el sector públic i el privat acaba el 2001 amb la publicació dels dos primers esborranys de la seqüència del genoma humà (Lander et al., 2001; Venter et al., 2001). Durant la primera meitat de la dècada del tombant de segle els avenços continuen a un ritme frenètic i a voltes difícil de digerir: centenars de genomes seqüenciats, identificació de la base genètica de desenes de malalties, utilització de l’enginyeria genètica en la vida quotidiana, estudi i descobriment de la gran variabilitat existent en el genoma humà en forma de SNP (de l’anglès single nucleotide polymorphism) i CNV (de l’anglès copy number variant), i els intents de trobar el paper d’aquesta variabilitat en la predisposició a malalties comunes i complexes. I la carrera del coneixement continua cada dia més ràpidament... Recentment, l’aparició de noves tecnologies de seqüenciació alternatives a la clàssica Sanger obren un nou horitzó que ens ha de permetre obtenir la major part (95 %) de la seqüència completa de genomes individuals per determinar les variacions normals i les alteracions causants de malalties. Ja tenim proves que això és factible i no pot deixar de sorprendre’ns que, el que desenes de centres de tot el món i centenars d’investigadors van trigar gairebé set anys, ara pot fer-se en setmanes en un únic laboratori!
ESTRUCTURES REPETITIVES EN EL GENOMA HUMÀ A mesura que el coneixement s’ha acumulat han sorgit noves preguntes, i així, una de les paradoxes que els biòlegs evolutius de mitjan segle xx van haver d’afrontar va ser l’observació que la complexitat dels organismes no estava correlacionada amb la mida del seu DNA. En aquella època es pensava que tot el material genètic estava constituït exclusivament per seqüència codificant (que, per tant, es convertiria en proteïna, la unitat funcional dels éssers vius), i així, era sorprenent veure que una ameba tenia un genoma fins a dues-centes vegades més gran que el dels éssers humans. Aquesta paradoxa va ser solucionada en els anys setanta, quan es va veure que no tot el genoma era codificant, sinó que tenia un elevat contingut repetitiu (Thomas, 1971; Gregory, 2005). De fet, ja des de les primeres descripcions del genoma humà es va veure que l’estrella principal de la genètica, les regions codificants, eren només aproximadament el 5 % del genoma (Lander et al., 2001) i almenys el 50 % del genoma estava compost per seqüències repetitives. Sovint maltractades i conegudes com a DNA escombraria (junk DNA), les seqüències repetitives són de vital importància per a l’estructura d’un genoma i, a més, són extremadament útils per als científics que l’estudiem per entendre’n l’evolució. Les repeticions són usades com un registre paleontològic d’esdeveniments evolutius que van passar milers (i milions) d’anys enrere i que van deixar alguna petjada en el genoma que avui dia encara podem detectar. D’altra banda, i en ser considerades moltes vegades com a seqüències neutres, són elements molt adients i altament utilitzats, encara avui dia, per fer tota mena d’estudis, com tests de paternitat, en criminologia, o
Estructura del genoma 61
reconstruccions filogenètiques. En general, les repeticions poden ser classificades en diferents famílies, que estan relacionades perquè en algun moment van compartir un avantpassat comú (de la mateixa manera que tots els éssers vius de la Terra estem classificats en grups o «calaixos» segons els nostres avantpassats). En aquest capítol distingirem entre dos grans tipus de repeticions: d’una banda, les que s’han anomenat duplicacions segmentàries (DS, de l’anglès segmental duplications, o LCR, de low copy repeats), que ocupen al voltant d’un 5 % del genoma humà i, d’altra banda, tots els altres tipus de repeticions, anomenades de manera genèrica repeticions comunes (de l’anglès common repeats), que conformen al voltant d’un 45 %. Repeticions comunes Les seqüències repetitives o repeticions comunes són fragments de DNA homòlegs que es troben en múltiples còpies (fins a milers) en el genoma. La manera com classifiquem generalment les repeticions està basada en els seus avantpassats, aquells elements actius que van començar un procés mutacional que va donar lloc a les grans famílies de repeticions que observem avui dia. De manera general, les podem agrupar en quatre grups diferents: a) Elements transposables (ET), distribuïts esparsament en el genoma (amb una longitud de fins a 30 kb) i que ocupen aproximadament el 45 % del genoma humà. b) Còpies retrotransposades inactives de gens cel·lulars, també anomenades pseudogens processats, que ocupen al voltant del 2 % del genoma humà. c) Repeticions simples i en tàndem d’un nombre reduït de nucleòtids (entre un i sis), ocupen un 3 % del genoma humà. d) Blocs de repeticions en tàndem, típi-
ques d’estructures cromosòmiques com centròmers i telòmers. El seu percentatge en el genoma humà és difícil d’avaluar amb exactitud, perquè són extremadament polimòrfics en mida i generalment es troben infrarepresentats en qualsevol projecte de seqüenciació. El grup més nombrós d’elements repetitius en els genomes dels mamífers són els elements transposables (ET). Els ET són fragments de DNA o RNA que són capaços de reproduir-se i inserir-se en el genoma hoste, i ocupen el 45 % del genoma humà. En mamífers es poden agrupar en quatre categories principals: elements llargs esparsos (LINE, long interspersed nuclear elements), que ocupen al voltant del 20 % del genoma humà, incloent-hi fins a 516.000 còpies del seu element més comú LINE-1; elements curts esparsos (SINE, short interspersed nuclear elements), que ocupen prop del 13 % del genoma humà, incloent-hi més d’un milió de còpies d’un element conegut com Alu; retrotransposons amb repeticions terminals llargues (LTR, long terminal repeat retrotransposons), que són elements que es mobilitzen mitjançant una molècula de RNA, generalment flanquejats per altres seqüències repetitives, que ocupen un 8 % del genoma humà i, finalment, transposons de DNA (o elements mòbils), que conformen aproximadament el 3 % del nostre genoma. Els tres primers es transposen mitjançant intermediaris de RNA, mentre que l’últim es transposa directament com a DNA. El segon major component en quantitat de contingut repetitiu del genoma són les repeticions simples. Aquestes són repeticions perfectes o imperfectes en tàndem de petits motius de seqüència. Si la unitat de repetició és petita (entre una i tretze bases) aquestes repeticions s’anomenen microsatèl·lits, i si tenen entre catorze i cinc-centes bases són anomenades minisatèl·lits. Aquestes repeticions es creu que s’originen per errors en la
62 T. Marquès-Bonet i L. Armengol
replicació del DNA per «relliscades» (slippage) de l’enzim DNA-polimerasa. Malgrat que moltes d’aquestes repeticions són considerades neutres, hi ha una colla de casos en els quals podem observar que tenen conseqüències funcionals i, per tant, afecten el fenotip. Així, hi ha repeticions que es troben dins de regions codificants o en les seves regions reguladores. Les mateixes repeticions dels telòmers o de les regions pericentromèriques són importants perquè són elements constituents dels cromosomes. A més, i com a exemple del paper funcional que aquestes repeticions poden arribar a tenir, cal destacar que entre cinquanta i cent gens del genoma humà han evolucionat a partir d’ET i de retrotransposons. Segurament, un dels exemples més antics és el del gen RAG1. Aquest gen es creu que es va crear fa uns 500 milions d’anys (en l’origen dels vertebrats amb mandíbula) i té un paper clau en la recombinació V(D)J (recombinació entre membres de famílies gèniques amb un paper important en el sistema immunitari) (Kapitonov i Jurka, 2005). Així mateix, molts microRNA (petits RNA que regulen l’expressió gènica), sembla que han evolucionat a partir d’ET i del seu paper en la competència per la regulació d’expressió de seqüències semblants (Lu et al., 2005). La distribució d’ET en el genoma no és homogènia, ja que tenen tendència a acumular-se preferentment en regions genòmiques que reuneixen característiques concretes, com per exemple els ET més antics, que es troben preferentment en regions amb alt contingut G + C (Lander et al., 2001). Aquesta distribució no aleatòria podria ser deguda a insercions no atzaroses en el genoma humà o a eliminacions selectives de les insercions atzaroses en certes regions. La inserció direccionada d’elements mòbils, malgrat la seva correlació amb altres elements, com poden ser les DS, no pot explicar tota
la gran distribució que observem en el genoma, i és per això que es creu que no tots els llocs del genoma tenen la mateixa capacitat d’acceptar insercions. Atès que molts ET són elements no neutres que poden afectar l’expressió gènica de gens adjacents, la selecció natural eliminaria aquelles insercions que destrueixen (o empitjoren) la funcionalitat del genoma. Duplicacions segmentàries. Les duplicacions segmentàries (DS) (conegudes antigament com LCR o low copy repeats, repeticions de baix nombre de còpia) són fragments contigus de DNA que es localitzen en dos o més llocs del genoma. Poden contenir qualsevol dels elements intrínsecs del genoma, des de gens sencers a trossos d’exons o introns, seqüències reguladores, o regions no codificants (Bailey i Eichler, 2006). En la cerca de la relació entre estructura i funció del genoma, les DS són de gran importància, ja que tenen un paper rellevant en ambdós aspectes; així, des del punt de vista de l’estructura, molts dels reordenaments i de les estructures polimòrfiques que conté el genoma estan relaciones amb DS (Armengol et al., 2003). I, d’altra banda, les DS tenen un paper cabdal en processos de recombinació homòloga no al·lèlica (RHNA, vegeu la figura 1), pels quals regions altament idèntiques però no ortòlogues es recombinen tot creant duplicacions, delecions o inversions d’un dels trossos de DNA implicats en el procés. Les DS recents (i, per tant, altament, idèntiques) tindrien tendència a convertir el genoma en regions fràgils amb tendència a fracturar-se. Això trenca amb una idea que havia estat estesa no fa gaires anys, segons la qual el genoma es fragmentava de manera atzarosa. D’altra banda, i ja des dels anys seixanta, es va reconèixer la importància de la duplicació gènica com a motor evolutiu capaç de crear novetat (Ohno et al., 1968). Diferents estudis han demostrat que les DS tenen un paper important en la crea-
Estructura del genoma 63
ció de nous gens, no solament mitjançant la duplicació de còpies íntegres de gens, sinó a causa de les dinàmiques de propagació de les DS, que sovint han resultat en la creació de noves variants gèniques per fusió gènica o per exaptació d’exons duplicats (Eichler, 2001). Finalment, i des del punt de vista mutacional, les duplicacions són també interessants ja que, al contrari que d’altres regions del genoma, són regions que permeten l’acumulació d’un elevat nombre de canvis nucleotídics. I no solament això: segons sembla, i a causa de la RHNA, regions properes a les DS també augmenten la probabilitat de veure’s implicades en processos de reestructuració (Cheng et al., 2005). En els darrers anys s’ha vist que diferents genomes tenen diferent contingut de DS. Per exemple, el genoma del ratolí té més o menys el mateix contingut relatiu de DS que l’humà (~ 5 %), però la seva distribució en els cromosomes (similar a la que es pot veure en el genoma de la rata) no és esparsa, sinó que es troben localitzades en un nombre limitat de regions i en estructura de tàndem (fins al 70-90 % del contingut duplicat és en tàndem, comparat amb el 40 % en el genoma humà) (She et al., 2008). En humans, contràriament, el que predominen són les duplicacions entre cromosomes (43 %, percentatge que es redueix fins al 13 % en el genoma del ratolí) (Bailey et al., 2002). Així, en els genomes dels primats (com a mínim a humans, ximpanzés, goril· les, orangutans i macacos) hi ha una clara tendència de les DS a acumular-se en les regions subtelomèriques i pericentromèriques dels cromosomes. Aquesta distribució esbiaixada i l’estudi de com s’ha generat ha suggerit diferents models de distribució en el quals la transferència de material entre aquestes complicades (i altament repetitives) regions del genoma seria un fet comú i ajudaria a explicar el format de «trencaclosques» que tenen molts dels blocs de DS (Bai-
ley i Eichler, 2006). Estudis recents han demostrat que les DS es troben organitzades al voltant de seqüències de DNA concretes (core elements), que sovint es troben associades amb regions codificants que han patit o que pateixen episodis de selecció positiva (Jiang et al., 2007). A més, s’ha pogut veure que l’evolució dels core elements no ha estat uniforme al llarg de l’evolució dels grans simis, sinó que hi ha hagut períodes de gran activitat duplicativa, contrastats amb altres períodes de relativa calma (Marquès-Bonet et al., 2009). En aquest sentit, la comparació de dues espècies tan properes com són humans i ximpanzés va demostrar que gairebé un terç de les duplicacions del genoma humà no eren presents en el genoma del ximpanzé (~ 25 Mb) (Cheng et al., 2005), i això posa de manifest l’impacte i la importància estructural i evolutiva de les DS, que són clau per entendre l’evolució dels genomes i, en conseqüència, de les espècies. VARIANTS ESTRUCTURALS EN EL GENOMA HUMÀ No fa gaires anys, amb la publicació de les primeres seqüències del genoma humà (Lander et al., 2001; Venter et al., 2001), s’anuncià que dos humans qualssevol eren 99,9 % idèntics pel que fa a la seqüència de DNA. En aquells moments, era ben coneguda l’existència de seqüències repetitives polimòrfiques en la població, en forma de microsatèl·lits, minisatèl·lits i d’altres, i se suposava que els milions de SNP existents eren la font definitiva de variabilitat i un dels principals responsables de modular el fenotip i la predisposició a la malaltia en humans. El projecte HapMap (TIH Consortium64, 2005) es va endegar per tal d’avançar en l’estudi d’aquest tipus de polimorfismes en diferents poblacions humanes i d’establir mapes d’haplotips per utilitzar-los amb
64 T. Marquès-Bonet i L. Armengol
finalitats de mapatge de gens causants de malalties humanes. Més recentment, amb l’avenç que va suposar la tecnologia de la hibridació genòmica comparada sobre suport sòlid (o arrayCGH) (Pinkel et al., 1998; Pollack et al., 1999), s’ha descobert l’existència d’una quantitat totalment inesperada de variants estructurals en el nostre genoma (Iafrate et al., 2004; Sebat et al., 2004). Amb el nom de variants estructurals (de l’anglès structural variants o SV) es coneixen aquelles regions del genoma de mida superior a 1 kb, per diferenciar-les dels polimorfismes d’inserció/deleció, que es troben en nombre, localització o orientació variables en diferents individus d’una mateixa espècie. Així doncs, sota aquest nom genèric trobem insercions, delecions, duplicacions, translocacions i inversions de material genètic. A dia d’avui, el grup més nombrós i conegut de variants estructurals el conformen les anomenades variants de nombre de còpia (de l’anglès copy number variants o CNV) que, com el seu nom indica, són fragments de genoma que es troben en un nombre de còpia variable entre individus i en comparació de la seqüència de referència del genoma humà. El març de 2008 s’havia informat d’un total de 15.466 CNV, que representen 5.083 locus independents i ocupen una fracció propera al 20 % de la seqüència eucromàtica del nostre genoma (vegeu la taula suplementària). Aquestes dades, però, són el resultat de l’anàlisi d’un nombre limitat d’individus amb unes tecnologies encara poc precises que resulten en una sobrerepresentació de CNV de mida gran, una infraestimació quant al nombre global i una sobrestimació quant a la mida que ocupen (Hurles et al., 2008; Kidd et al., 2008). El nombre de regions variables reconegudes en el genoma de cada individu ha anat variant a mesura que s’han emprat tecnologies amb una major resolució, i hem passat de desenes (Iafrate et al., 2004; Sebat et al., 2004) a centenars
(Tuzun et al., 2005; Redon et al., 2006; Korbel et al., 2007) i, segurament, es comptaran per sobre del miler (Hurles et al., 2008). Les CNV estan distribuïdes de manera aleatòria per tot el genoma, però mostren un clar enriquiment en regions que contenen DS (Redon et al., 2006) i se suposa que aquest fet està relacionat amb un dels mecanismes pel qual s’originen (vegeu la figura 1) i perquè les CNV no deixen de ser DS que encara no s’han fixat en la població. Cal remarcar que, amb el coneixement que tenim ara mateix, la definició d’una seqüència concreta com a CNV o com a DS dependrà només de si les diferents còpies es troben o no en el genoma de referència. El reconeixement de la importància funcional d’aquestes variants és una mostra del seu paper en certes malalties (vegeu la taula 2), però està molt lluny de ser complet. Atesa la seva mida, moltes es troben superposades amb gens i altres elements funcionals del genoma (promotors, enhancers, etc). Almenys en teoria, l’alteració del genoma que representen les variants estructurals pot tenir efectes importants en l’expressió de gens (vegeu la figura 3) i, per tant, pot ser determinant en el fenotip dels individus. Tot i així, un estudi recent fet en línies cel· lulars derivades de limfòcits de dos-cents setanta individus ha demostrat que tan sols un 18 % de la variabilitat d’expressió mesurable és atribuïble a les CNV, i la resta als SNP (Stranger et al., 2007). Això no obstant, hi ha un cert consens que aquestes dades representen una infravaloració del paper de les CNV, ja que es van obtenir emprant dades que avui sabem que estaven esbiaixades (Hurles et al., 2008). La implicació de les CNV en malalties ha estat provada en una bona colla de casos (vegeu la taula 2). En alguns es tracta de variants de nombre de còpia rares que causen directament malalties mentre que, en altres, són variants freqüents en la pobla-
Estructura del genoma 65
ció que confereixen un increment en la susceptibilitat a patir certes malalties. És també destacable, igual com succeeix amb els SNP i altres variants, que la seva distribució poblacional no és homogènia, i certes variants són més freqüents en unes poblacions humanes que en unes altres i representen un possible indicador de processos recents d’adaptació a l’entorn (Perry et al., 2007; Kidd et al., 2008). En aquest sentit, les variants estructurals representen un nou món de variabilitat a explorar que ha estat obviada en els grans estudis d’associació a escala de genoma sencer que s’han fet fins avui, i que van tenir el seu màxim exponent el darrer any amb la publicació de nombrosos treballs d’associació entre ma-
lalties complexes i SNP (Saxena et al., 2007; Tomlinson et al., 2007). Malgrat la velocitat a què s’ha avançat en els darrers quatre anys, d’ençà que es va reconèixer que les SV eren molt més freqüents del que es creia, hi ha certs aspectes tècnics que encara cal solucionar per poder estudiar la implicació d’aquest tipus de variants en malalties complexes a escala del genoma complet. Les tecnologies per estudiar-ne un nombre reduït en milers d’individus estan al nostre abast (vegeu Estivill i Armengol, 2007). Però fer-ho a escala de genoma global ja són figues d’un altre paner. Aspectes com poder diferenciar la mida exacta de la variant estructural, el nombre de còpies d’un al·lel determinat o la seva orientació
Duplicació ATGCTAGCTATAGCTCAGTGCTAGCTGATGCTAGCTAGCTAGCTAGCTGATCGATCGTACGTAGCTAGCTAGC A A’
Chr1, Cžpia 1
AGCTAGCTAGCT
Recombinació no homòloga Chr1, Cžpia 2
AGCTAGCTAGCT
AGCTAGCTAGCT
AGCTAGCTAGCT
Chr1, Resultat 1
Chr1, Resultat 2
Figura 1. Recombinació homòloga no al·lèlica, reorganitzacions i duplicacions. L’encreuament entre còpies no homologues durant la meiosi pot potenciar duplicacions i delecions de segments de DNA (en vermell en l’esquema). Aquests tipus de reorganitzacions genòmiques poden conduir a polimorfismes estructurals capaços de conferir susceptibilitat per a certes malalties.
66 T. Marquès-Bonet i L. Armengol
i localització cromosòmiques són crucials VARIANTS ESTRUCTURALS per poder emprar aquesta informació en EN ALTRES MAMÍFERS estudis d’associació. Tot indica que una de les solucions de futur passa per la seqüenAvui dia encara coneixem poca cosa de ciació completa de genomes individuals. les CNV en mamífers. Pels pocs estudis De la mà de les tecnologies de seqüencia- efectuats, s’ha vist que les CNV en mamíció de nova generació (ABI-Solid, Illumina- fers tampoc no estan distribuïdes a l’atzar Solexa, Roche-454) i ultraseqüenciació (He- en el genoma, sinó que es troben també relicos) serà una realitat en els propers anys. gularment associades amb DS i, a més, es Alguns treballs recents ja han emprat apli- troben enriquides amb gens (Cooper et al., cacions d’aquestes tecnologies per a la iden- 2007). A l’hora de veure diferències entre tificació de variants estructurals en el geno- llinatges, i amb l’estudi de llocs polimòrfics ma (Kidd et al., 2008). en ratolins de laboratori, s’ha vist que la taDistribució genòmica de les Duplicacions Segmentals (DSs) > 20 Kb de xa de creació de llocs polimòrfics és més aldiferents primats (humà, ximpanzétai que macaco) en el (com genoma humàun ordre de en primats a mínim 10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
160
170
180
190
200
210
220
230
240
chr21
10
20
30
40
chr2
10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
160
170
180
190
200
210
220
230
240
chr20
10
20
30
40
50
60
chr3
10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
160
170
180
190
chr19
10
20
30
40
50
60
chr4
10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
160
170
180
190
chr18
10
20
30
40
50
60
70
chr5
10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
160
170
180
chr17
10
20
30
40
50
60
70
chr6
10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
160
170
chr16
10
20
30
40
50
60
70
80
chr7
10
20
30
40
50
60
70
80
90
100
110
120
130
140
150
chr15
10
20
30
40
50
60
70
80
90
100
chr8
10
20
30
40
50
60
70
80
90
100
110
120
130
140
chr14
10
20
30
40
50
60
70
80
90
100
chr9
10
20
30
40
50
60
70
80
90
100
110
120
130
chr13
10
20
30
40
50
60
70
80
90
100
110
chr10
10
20
30
40
50
60
70
80
90
100
110
120
130
chr12
10
20
30
40
50
60
70
80
90
100
110
120
130
chrX
10
20
30
40
50
60
70
80
90
100
110
120
130
chr11
10
20
30
40
50
60
70
80
90
100
110
120
130
chr1
10
chr22
20
30
40
DSs Humanes DSs Ximpanzés DSs Macaco
140
150
Figura 2. Distribució cromosòmica de les duplicacions segmentàries en humans i altres primats. Les duplicacions segmentàries tenen tendència a acumular-se en les regions subtelomèriques i pericentromèriques i, a més, les més noves acostumen a crear-se al voltant de duplicacions més antigues. Això es pot observar en aquests mapes, on hem dibuixat les duplicacions segmentaries (> 20 kb) en el genoma humà (blau), del ximpanzé (verd) i del macaco (marró).
Estructura del genoma 67
magnitud) i que molts d’aquests llocs variants es van creant recurrentment en determinats locus del genoma (Egan et al., 2007). Aquest resultat concorda amb altres mesures de divergència com les taxes de substitució, per a les quals s’ha observat que en els rosegadors són marcadament més altes que en la resta de mamífers (Waterston et al., 2002), segurament a causa de la seva taxa metabòlica (més alta) o al temps generacional (més curt). Només alguns estudis han adreçat aquest tema en primats no humans (ximpanzés i macacos), per tal de poder fer la comparació més directa amb els humans (Perry et al., 2006, 2008; Lee et al., 2008). Segons sembla, aquests primats tenen un nombre de llocs variants més alt que els humans (sense arribar al nivell dels rosegadors), resultat també congruent tenint en compte que els ximpanzés i macacos són també més divergents entre si en
seqüència (CSA Consortium, 2005; Gibbs et al., 2007; Hernandez et al., 2007). És interessant veure que molts dels llocs que són estructuralment variables en ximpanzés o macacos ho són també en humans i, a més, acostumen a estar superposats amb DS comunes a les dues espècies, i sembla que la RHNA és el mecanisme causal per a algunes de les CNV. Aquestes observacions, òbviament, obren un escenari segons el qual l’estructura del genoma convertiria certes regions en llocs extremadament fràgils, amb més probabilitat de patir reorganitzacions recurrentment al llarg de l’evolució. Les conseqüències d’aquests moviments no són banals, ja que els llocs estructuralment polimòrfics s’ha demostrat que a) podrien tenir un impacte global en el genoma més gran que altres variants com ara els SNP i b) tot just es comença a descobrir la seva importància E
D
*
* Deleció
F
duplicació
G
H
inversió
Figura 3. Diferents possibles efectes dels CNV sobre elements funcionals del genoma. a) Una variant de deleció elimina per complet l’expressió d’un dels dos al·lels. b) La variant de deleció desemmascara una mutació recessiva present en l’al·lel no delecionat. c) Una variant de duplicació crea una nova còpia d’un gen. d) Una inversió d’un element regulador i els tres primers exons d’un gen provoquen la pèrdua d’una pauta oberta de lectura en l’al·lel invertit i l’alteració de l’expressió normal d’aquest gen. e) La variant d’inversió, que afecta només un dels al·lels, reorganitza els exons del gen i provoca un canvi en el patró d’empalmament que té com a conseqüència l’expressió d’un nou transcrit.
68 T. Marquès-Bonet i L. Armengol Taula 1. Contingut en duplicacions d’alguns dels genomes seqüenciats
DS > 1 Kb Mida del genoma Mb)
2,3 %
Caenorhabditis elegans 4,30 %
Drosophila melanogaster 1,20 %
2,864
97
123
Humà
Ximpanzé
Macaco
5,20 %
~5 %
2,866
2,866
Ratolí
Rata
Pollastre
4,94 %
1,60 %
2,70 %
2,506
2,566
1,040
El contingut de duplicacions segmentàries, així com la seva distribució, canvia entre organismes. En aquesta taula hem resumit el contingut de duplicacions detectades en parells (WGAC (Bailey et al., 2001; She et al., 2006), amb més del 90 % d’identitat i majors d’1 kb). Els segments de DNA que no han estat assignats a cromosomes en el procés d’acoblament no van ser tinguts en compte (modificat de Bailey i Eichler, 2006).
en l’expressió i regulació dels gens adjacents, així com en malalties genètiques (Perry et al., 2006; Kidd et al., 2008; Lee et al., 2008). ESTRUCTURA DEL GENOMA HUMÀ I MALALTIA El genoma nuclear humà es troba repartit en un total de vint-i-dos parells d’autosomes i un parell de cromosomes sexuals. En totes i cadascuna dels milers de milions de cèl·lules del nostre cos, el genoma es troba en un equilibri dinàmic que combina estadis d’activitat per mantenir la funció cel· lular amb replicacions per donar lloc a les cèl·lules filles. Els cicles de replicació estan finament regulats per una gran quantitat de mecanismes que asseguren la replicació fidel del DNA i que, en cas de no ser possible, condueixen la cèl·lula a una mort programada. Així doncs, el control de l’arquitectura del genoma és crucial per a la supervivència de la cèl·lula i, en gran mesura, també de la viabilitat i capacitat de reproducció de l’organisme adult. L’alteració de l’estructura del genoma té conseqüències molt variables: algunes són aparentment innòcues (vegeu el cas de les CNV a dalt) però d’altres tenen greus efectes sobre els individus portadors o la descendència. Fins i tot s’ha postulat que aquesta arquitectura seria crucial per marcar esdeveniments d’especiació
simpàtrica dels organismes (Navarro i Barton, 2003). Les malalties causades per alteracions en l’estructura dels cromosomes són un clar exemple que la selecció natural deixa poc marge de maniobra a l’experimentació amb la informació genètica i que actua, en la majoria dels casos, per preservar una configuració determinada que, almenys, podem dir que funciona de manera adequada en l’entorn on es desenvolupa l’organisme. Aquestes malalties són el resultat de canvis en l’expressió dels gens, originats per l’alteració de l’estructura del genoma, que pot afectar el nombre de cromosomes (aneusomies o aneuploïdies) o fragments de cromosomes que contenen diversos gens (aneusomies segmentàries), i es pot trobar dins de gens (expansions de triplets), fins i tot com a conseqüència d’errors en els mecanismes que controlen la conformació i estructura normals del DNA (les modificacions epigenètiques de la cromatina). Potser el cas paradigmàtic d’alteracions en l’arquitectura del genoma com a font de malaltia el trobem amb les anomenades malalties genòmiques (Lupski, 1998), que resulten de la translocació, inversió, duplicació o deleció de regions cromosòmiques que contenen un o més gens sensibles a dosi. L’origen d’aquests reordenaments cal buscar-lo, en la majoria dels casos, en processos meiòtics de recombinació homòloga no al·lèlica (RHNA, vegeu la figura 1) entre còpies parà-
Estructura del genoma 69
logues de duplicons (Lupski, 1998; Mazzarella i Schlessinger, 1998), tot i que també poden originar-se per processos de fusió d’extrems no homòlegs o, en mitosi, per processos de fork stalling and template switching (Lee et al., 2007). En els processos de RHNA, el grau d’identitat dels duplicons, la seva orientació i la localització cromosòmica determinaran el tipus de reordenament que té lloc entre les còpies paràlogues, que poden estar en cromosomes diferents, en cromosomes homòlegs, entre cromàtides germanes i, fins i tot, dins d’una mateixa cromàtida. Aquests tipus de reordenament dóna lloc a malalties com poden ser les α-talassèmies, la neuropatia hereditària amb hipersensibilitat a la pressió (HNPP) o les síndromes d’Angelman i Prader-Willi (PWAS), per esmentar només unes quantes de les més de cinquanta malalties monogèniques i sindròmiques que es coneixen. Malgrat que inicialment no estaven previstes, per l’àmplia definició del terme malaltia genòmica, sensu stricto també hauríem de comptar les malalties que recentment s’han descrit associades a la presència de diferents al·lels de nombre de còpia, com poden ser la pancreatitis hereditària, l’Alzheimer, el lupus eritematós disseminat, la malaltia de Chron o certes formes de glomerulonefritis, autisme o esquizofrènia (vegeu la taula 2). ESTRUCTURA DEL GENOMA HUMÀ I EVOLUCIÓ La inestabilitat i plasticitat del genoma és una característica fenotípica més i, com a tal, està subjecta a la selecció natural. Això no obstant, no totes les reestructuracions o regions variants del genoma tenen un efecte deleteri (nociu) sobre l’organisme que les porta (si no, no les veuríem de manera massiva en organismes viables avui dia). Per tant, l’estructura mateixa del genoma ens
dóna informació sobre episodis del passat, de la relació entre espècies i de com hi ha actuat la selecció. Selecció en regions duplicades i repetitives Per exemple, els elements repetitius no són només agents mutacionals actius (tenen unes taxes de mutació molt més elevades que les regions de DNA de còpia única), sinó que són capaços de a) remodelar genomes sencers mitjançant recombinació no homòloga (i, per tant, generar reorganitzacions cromosòmiques), b) crear, de nous gens, la combinació de noves variants gèniques i c) modular el contingut G + C (amb la repercussió posterior que això pot tenir en altres taxes de mutació). Una característica debatuda, però de vital importància, és que moltes repeticions (com el cas de les DS) poden no solament canviar la taxa de mutació seva mateixa, sinó també de les seqüències adjacents, i aporten aleshores una nova visió, ja que no totes les regions del genoma tindrien la mateixa probabilitat de ser duplicades i, per tant, de ser subjectes a la selecció. Concretament, i parlant en escala temporal, l’activitat dels transposons sembla que no ha estat homogènia i que ha declinat marcadament en els darrers 35-50 milions d’anys (excepte potser la família LINE1). És interessant veure que els elements Alu sembla que han patit una increïble explosió uns quaranta milions d’anys enrere just en la radiació dels primats (Lander et al., 2001; Venter et al., 2001; CSA Consortium, 2005; Gibbs et al., 2007). L’estudi dels genomes d’altres organismes, com ara el del ratolí, demostra que aquesta disminució d’activitat de transposició podria ser específica de primats (Lander et al., 2001). Els genomes són estructures conservadores que intenten preservar la seva integritat
Sí Sí Sí Sí Sí Sí Sí Sí Sí Sí No No
Artritis reumatoide
Diabetis de tipus 1
Púrpura trombocitopènica idiopàtica
Lupus eritematós sistèmic
Lupus eritematós sistèmic
Poliangiitis microscòpica
Granulomatosi de Wegener
Malaltia de Crohn
Psoriasi
Psoriasi
Pancreatitis hereditària
Pancreatitis hereditària
PRSS1
SPINK1
LCE3C/B
DEFB
DEFB4
FCGR3B
FCGR3B
C4A/C4B
FCGR3B
FCGR2C
CCL3L1
CCL3L1
CCL3L1
Gen
No No NA Variable Sí
Malaltia de Parkinson (forma juvenil)
Malaltia d’Alzheimer (forma juvenil)
Autisme (i trastorns associats)
Esquizofrènia
Malalties genòmiques 1
No
Trastorn bipolar
Múltiple
Múltiple
Múltiple
APP
SNCA
GSK3B
Malalties neurològiques, psiquiàtriques i del neurodesenvolupament
Sí
SD
Susceptibilitat infecció VIH-1/sida
Malalties inflamatòries i autoinmunitàries
Malaltia o condició
Dosi
Dosi
Dosi
Dosi
Dosi
Posicional
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Dosi
Efecte
Delecions i duplicacions
Diversos autors
TISC, 2008; Walsh et al., 2008
Sebat et al., 2007; Szatmari, 2007
De novo CNV, múltiples Múltiple
Rovelet-Lecrux et al., 2006
Singleton et al., 2003
Lachman et al., 2007
Le Maréchal et al., 2006
Masson et al., 2006
De Cid et al. [en prep.]
Hollox et al., 2007
Fellermann et al., 2006
Fanciulli et al., 2007
Fanciulli et al., 2007
Yang et al., 2007
Aitman et al., 2006; Fanciulli et al., 2007
Breunis et al., 2008
McKinney et al., 2007
McKinney et al., 2007
Gonzalez et al., 2005
Referència
Duplicació
Duplicació / Triplicació
Nombre de còpia elevat
Duplicació / Triplicació
Deleció
Nombre de còpia baix
Nombre de còpia elevat
Nombre de còpia baix
Nombre de còpia baix
Nombre de còpia baix
Nombre de còpia baix
Nombre de còpia baix
Activació de FCGR2C-ORF
Nombre de còpia elevat
Nombre de còpia elevat
Nombre de còpia baix
Al·lel de risc
Taula 2. Malalties associades a variants de nombre de còpia
70 T. Marquès-Bonet i L. Armengol
No Sí Sí
Sí Sí
Sí Sí Sí Sí Sí Sí No SD
Leucèmia limfoblàstica BCR–ABL1
Leucèmia mieloide aguda
Leucèmia prolimfocítica de cèl·lules T
Leucèmia limfocítica crònica
Limfoma de cèl·lules de mantell
Limfoma fol·licular
Mieloma múltiple
Adenocarcinoma de pulmó
Neuroblastoma
Hepatoblastoma
Càncer pancreàtic
Càncer de mama familiar
Càncer de còlon primari
Múltiple
MTUS1
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Gen
Dosi
Posicional
Variable
Variable
Variable
Dosi
Dosi, UPDl
UPD
Dosi, posicional, UPD
Dosi, UPD
Dosi, posicional, UPD
UPD
Dosi
Dosi
Efecte
Múltiple
Deleció d’exó comporta baix risc
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Múltiple
Al·lel de risc
Camps et al., 2008
Frank et al., 2007
Lucito et al., 2007
Suzuki et al., 2008
Selzer et al., 2005
Weir et al., 2007
Walker et al., 2006
Fitzgibbon et al., 2007
Bea et al. [en prep.]
Pfeifer et al., 2007
Durig et al., 2007
Raghavan et al., 2005
Mullighan et al., 2008
Mullighan et al., 2007
Referència
Més d’una trentena de malalties han estat associades a variants de nombre de còpia. 1 Inclou més d’una cinquantena de malalties del neurodesenvolupament considerades com a malalties rares per la seva «baixa» freqüència. Entre aquestes podem destacar, per freqüència en la població, les síndromes de DiGeorge, de Prader-Willi/Angelman i de Williams-Beuren.
Sí
SD
Leucèmia limfoblàstica aguda
Càncer
Malaltia o condició
Estructura del genoma 71
72 T. Marquès-Bonet i L. Armengol
per continuar funcionant, i han evolucionat tota una sèrie de mecanismes per contrarestar els efectes d’aquest bombardeig d’insercions paràsites (i transgèniques). Per tant, els ET i els genomes hostes estan buscant sempre la manera de suprimir les insercions de codi forà (els genomes hostes) o de burlar els sistemes de suprimir activitats defensives dels genomes (per part dels ET) (Jurka et al., 2007). Una pregunta que surt d’aquesta observació és: per què els genomes complexos i de tarannà conservatiu han permès la massificació d’elements forans (fins a un 45 % del seu genoma)? Sembla que alguns ET poden ser beneficiosos per als hostes i, per tant, poden haver evolucionat no de manera neutra o pertorbadora per a l’organisme que els accepta, sinó donant-los algun avantatge evolutiu que hauria d’augmentar-ne les possibilitats de supervivència. Pel que fa a les DS, i tal com abans s’ha esmentat, diferents evidències suggereixen que alguns dels gens que es troben a dins seu podrien haver estat sotmesos a processos de selecció positiva que haurien ajudat a la ràpida dispersió d’aquests elements en el genoma. Això és encara més clar en el cas de gens que es troben en els core elements de les duplicacions, que actuarien com a elements catalitzadors, duplicant-se i arrossegant altres seqüències contigües (Jiang et al., 2007). Selecció en regions variants del genoma Ja que les CNV estan distribuïdes per tot el genoma però mostren enriquiment en certes zones, s’espera que l’explicació d’aquest fenomen pugui provenir d’un biaix de la font mutacional que les crea, o bé del fet que han estat subjectes a un procés de selecció natural que no permet a totes les regions del genoma de ser tan «flexibles». Segurament (i com sempre) la resposta en-
certada pot ser una combinació de les dues. Malgrat que sabem que moltes CNV podrien estar subjectes a la selecció natural, algunes poden ser catalogades com a neutres i, per tant, poden tenir un efecte suau o nul en el fenotip dels individus. Entre dos individus catalogats com a fenotípicament «normals» podem trobar prop d’un miler de regions variants (Dermitzakis et al., 2008) i, a més, estudis en ratolins han demostrat que grans delecions (de fins a una megabase) no tenen un efecte fenotípic clar (Nobrega et al., 2004). Com hem vist abans, les CNV tenen un paper decisiu en algunes malalties genètiques humanes. Així, els efectes de la selecció purificadora haurien de ser més visibles en les delecions, en què, per definició, l’efecte fenotípic hauria de ser més clar, i això és el que observem en la distribució de CNV, en què les delecions estan en franca minoria i tendeixen a evitar zones d’alt contingut gènic (Conrad et al., 2006). Sorprenentment, també hi ha casos de selecció darwiniana (adaptativa o positiva) en variants estructurals. Un estudi va trobar una inversió polimòrfica en el cromosoma 17 humà amb evidències de selecció positiva, potencialment lligada a un increment de la fertilitat (Stefansson et al., 2005; Zody et al., 2008). I no solament això: molts dels gens afectats per CNV es troben en categories típicament associades a episodis de selecció positiva en humans, com ara gens d’adaptació a l’entorn i immunitat. Un altre exemple de la possible no-neutralitat de moltes d’aquestes variants estructurals el trobem en l’evolució dels cromosomes. La reconstrucció dels cariotips ancestrals de mamífers ha demostrat que els punts de trencament de les reorganitzacions cromosòmiques no són a l’atzar, sinó que al llarg de l’evolució hi ha hagut certs punts del genoma (generalment associats a DS) que han estat recurrentment reorganitzats (Murphy et al., 2005). De tota
Estructura del genoma 73
manera, la relació entre les DS i els punts de trencament no és necessàriament causal i, per tant, podrien estar relacionades per altres motius encara per determinar. Evolució cromosòmica Si ens fixem precisament en l’evolució de l’estructura dels cromosomes i, més concretament, en l’evolució en primats, podem veure que l’estructura no s’ha mantingut igual, i diverses configuracions han aparegut i desaparegut en l’evolució dels grans simis als humans. Un dels exemples més atractius i clarificadors per veure com l’evolució ha modelat l’estructura dels cromosomes és el cromosoma 2 humà. Tots els grans simis tenen vint-i-quatre cromosomes, i només els humans en tenim vint-itres. Aquesta reducció del nombre cromosòmic prové de la fusió de dos cromosomes ancestrals en un únic cromosoma. Les evidències per a aquesta observació provenen de a) els cromosomes anàlegs de ximpanzé tenen exactament el mateix patró de bandes que els dos braços del cromosoma 2, b) en el lloc de la hipotètica fusió dels dos cromosomes trobem (invertides) les típiques estructures repetitives dels telòmers —puntes dels cromosomes, on es creu que es va donar la fusió (Baldini et al., 1991)—, i c) com que cada cromosoma només té un centròmer, la fusió dels dos cromosomes hauria d’anar correlacionada amb la desactivació d’un d’aquests. I seguint la predicció, podem veure que el centròmer ancestral ara localitzat al braç q del cromosoma 2 està desactivat, malgrat que s’hi poden trobar restes d’elements repetitius típics d’aquesta estructura (Avarello et al., 1992). Precisament els centròmers no són elements fixos i estables en l’evolució d’un cromosoma, i fins a catorze noves activacions i consegüents desactivacions i relocalitzacions de
centròmers han ocorregut en els darrers vint-i-cinc milions anys d’evolució (des de la separació de les mones del Vell Món i els grans simis) (Ventura et al., 2007). Tot i això, aquestes fissions i moviments centròmerics no són els únics moviments cromosòmics entre humans i altres primats. Ja des dels anys vuitanta es va veure que els genomes dels grans simis i els dels humans estaven separats per multitud de reorganitzacions (Yunis i Prakash, 1982). Concretament, entre humans i ximpanzés podem veure fins a nou grans inversions (detectades a escala citogenètica). En altres llinatges (com ara els hilobàtids, el gibó) trobem una taxa de reorganitzacions francament més alta i hi ha més de quaranta grans reorganitzacions cromosòmiques (Roberto et al., 2007). Les reorganitzacions cromosòmiques (inversions o translocacions) han estat des de fa temps en el punt de mira evolutiu pel seu possible paper en la creació d’espècies. Un dels mecanismes clàssics d’especiació cromosòmica (no l’únic) prediu que diferents reorganitzacions cariotípiques dins d’una espècie podrien contribuir a establir una barrera reproductiva mitjançant la noviabilitat (o viabilitat reduïda) de l’híbrid, o bé produint-ne l’esterilitat (Navarro i Barton, 2003). De tota manera, i malgrat que han estat demostrats en altres espècies (cavalls, gira-sols, mosquits, etc.) diferents papers de les reorganitzacions en processos d’especiació, avui creiem que en la nostra espècie no sembla haver estat un fet habitual (Marques-Bonet et al., 2007). COROĿLARI Però, quin és el motiu perquè el nostre genoma sigui tan flexible i variable? Per què l’evolució ha deixat que contingui aquesta mena de bombes de rellotgeria en forma de seqüències altament idèntiques i repetiti-
74 T. Marquès-Bonet i L. Armengol
ves causants de reordenaments? Per què no han estat eliminades durant l’evolució? La presència d’aquestes seqüències representa una fulla de doble tall. D’una banda són regions dinàmiques que permeten fer experiments amb blocs del genoma que poden, a la llarga i en algunes circumstàncies, conferir avantatges als portadors mitjançant la creació de noves conformacions o de nous productes gènics, i són la manera de conservar el necessari dinamisme que permet al genoma respondre a canvis de l’entorn. Però d’altra banda, i en una manifestació del yin-yang de la natura, això no és gratuït i té conseqüències, indesitjables en molts casos i a curt termini, en forma de reordenaments que poden afectar la viabilitat dels organismes i causar malalties. Com en tantes altres coses de la vida, no hi ha ni bons ni dolents, ni blancs ni negres... Tot depèn del punt de vista de l’observador. BIBLIOGRAFIA Aitman, T. J.; Dong, R. [et al.] (2006). «Copy number polymorphism in Fcgr3 predisposes to glomerulonephritis in rats and humans». Nature, 439: 851855. Armengol, L.; Pujana, M. A. [et al.] (2003). «Enrichment of segmental duplications in regions of breaks of synteny between the human and mouse genomes suggest their involvement in evolutionary rearrangements». Hum. Mol. Genet., 12: 22012208. Avarello, R.; Pedicini, A. [et al.] (1992). «Evidence for an ancestral alphoid domain on the long arm of human chromosome 2». Hum. Genet., 89: 247-249. Bailey, J. A.; Eichler, E. E. (2006). «Primate segmental duplications: crucibles of evolution, diversity and disease». Nat. Rev. Genet., 7: 552-564. Bailey, J. A.; Gu, Z. [et al.] (2002). «Recent segmental duplications in the human genome». Science, 297: 1003-1007. Bailey, J. A.; Yavor, A. M. [et al.] (2001). «Segmental duplications: organization and impact within the current human genome project assembly». Genome Res., 11: 1005-1017. CSA Consortium (2005). «Initial sequence of the
chimpanzee genome and comparison with the human genome». Nature, 437: 69-87. Conrad, D. F.; Andrews, T. D. [et al.] (2006). «A highresolution survey of deletion polymorphism in the human genome». Nat. Genet., 38: 75-81. Cooper, G. M.; Nickerson, D. A. [et al.] (2007). «Mutati onal and selective effects on copy-number variants in the human genome». Nat. Genet., 39: S22-S29. Cheng, Z.; Ventura, M. [et al.] (2005). «A genomewide comparison of recent chimpanzee and human segmental duplications». Nature, 437: 88-93. Egan, C. M.; Sridhar, S. [et al.] (2007). «Recurrent DNA copy number variation in the laboratory mouse». Nat. Genet., 39: 1384-1389. Eichler, E. E. (2001). «Recent duplication, domain accretion and the dynamic mutation of the human genome». Trends. Genet., 17: 661-619. Estivill, X.; Armengol, L. (2007). «Copy number variants and common disorders: filling the gaps and exploring complexity in genome-wide association studies». PLoS. Genet., 3: 1787-1799. Gibbs, R. A.; Rogers, J. [et al.] (2007). «Evolutionary and biomedical insights from the rhesus macaque genome». Science, 316: 222-234. Gonzalez, E.; Kulkarni, H. [et al.] (2005). «The influence of CCL3L1 gene-containing segmental duplications on HIV-1/AIDS susceptibility». Science, 307: 1434-1440. Gregory, T. R. (2005). «Genome size evolution in animals». A: Gregory, T. R. [ed.]. The evolution of the genome. San Diego: Elsevier, 3-87. Gusella, J. F.; Wexler, N. S. [et al.] (1983). «A polymorphic DNA marker genetically linked to Huntington’s disease». Nature, 306: 234-238. Hernandez, R. D.; Hubisz, M. J. [et al.] (2007). «Demographic histories and patterns of linkage disequilibrium in Chinese and Indian rhesus macaques». Science, 316: 240-243. Hershey, A. D.; Chase, M. (1952). «Independent functions of viral protein and nucleic acid in growth of bacteriophage». J. Gen. Physiol., 36: 39-56. Hollox, E. J.; Huffmeier, U. [et al.] (2008). «Psoriasis is associated with increased beta-defensin genomic copy number». Nat. Genet., 40: 23-25. Hurles, M. E.; Dermitzakis, E. T. [et al.] (2008). «The functional impact of structural variation in humans». Trends. Genet., 24: 238-245. Iafrate, A. J.; Feuk, L. [et al.] (2004). «Detection of large-scale variation in the human genome». Nat. Genet., 36: 949-951. Jiang, Z.; Tang, H. [et al.] (2007). «Ancestral reconstruction of segmental duplications reveals punctuated cores of human genome evolution». Nat. Genet., 39: 1361-1368.
Estructura del genoma 75
Jurka, J.; Kapitonov, V. V. [et al.] (2007). «Repetitive sequences in complex genomes: structure and evolution». Annu. Rev. Gen. Hum. Genet., 8: 241-259. Kapitonov, V. V.; Jurka, J. (2005). «RAG1 core and V(D)J recombination signal sequences were deriv ed from Transib transposons». PLoS. Biol., 3: e181. Kidd, J. M.; Cooper, G. M. [et al.] (2008). «Mapping and sequencing of structural variation from eight human genomes». Nature, 453: 56-64. Korbel, J. O.; Urban, A. E. [et al.] (2007). «Systematic prediction and validation of breakpoints associated with copy-number variants in the human genome». Proc. Natl. Acad. Sci. USA, 104: 10110-10115. Lander, E. S.; Linton, L. M. [et al.] (2001). «Initial sequencing and analysis of the human genome». Nature, 409: 860-921. Lee, A. S.; Gutierrez-Arcelus, M. [et al.] (2008). «Analysis of copy number variation in the rhesus macaque genome identifies candidate loci for evolutionary and human disease studies». Hum. Mol. Genet., 17: 1127-1136. Lee, J. A.; Carvalho, C. M. [et al.] (2007). «A DNA replication mechanism for generating nonrecurrent rearrangements associated with genomic disorders». Cell, 131: 1235-1247. Lu, C.; Tej, S. S. [et al.] (2005). «Elucidation of the small RNA component of the transcriptome». Science, 309: 1567-1569. Lupski, J. R. (1998). «Genomic disorders: structural features of the genome can lead to DNA rearrangements and human disease traits». Trends. Genet., 14: 417-422. Marques-Bonet, T.; Kidd, J. M. [et al.] (2009). «A burst of segmental duplications in the African great ape genome ancestor». Nature. [En premsa] Marques-Bonet, T.; Sanchez-Ruiz, J. [et al.] (2007). «On the association between chromosomal rearrangements and genic evolution in humans and chimpanzees». Genome Biol., 8: R230. Mazzarella, R.; Schlessinger, D. (1998). «Pathological consequences of sequence duplications in the human genome». Genome Res., 8: 1007-1021. Morgan, T. H. (1915). «Localization of the hereditary material in the germ cells». Proc. Natl. Acad. Sci. USA, 1: 420-429. Murphy, W. J.; Larkin, D. M. [et al.] (2005). «Dynamics of mammalian chromosome evolution inferred from multispecies comparative maps». Science, 309: 613-617. Navarro, A.; Barton, N. H. (2003). «Chromosomal speciation and molecular divergence–accelerated evolution in rearranged chromosomes». Science, 300: 321-324. Nobrega, M. A.; Zhu, Y. [et al.] (2004). «Megabase de-
letions of gene deserts result in viable mice». Nature, 431: 988-993. Ohno, S.; Wolf, U. [et al.] (1968). «Evolution from fish to mammals by gene duplication». Hereditas, 59: 169-187. Perry, G. H.; Dominy, N. J. [et al.] (2007). «Diet and the evolution of human amylase gene copy number variation». Nat. Genet., 39: 1256-1260. Perry, G. H.; Tchinda, J. [et al.] (2006). «Hotspots for copy number variation in chimpanzees and humans». Proc. Natl. Acad. Sci. USA, 103: 8006-8011. Perry, G. H.; Yang, F. [et al.] (2008). «Copy number variation and evolution in humans and chimpanzees». Genome Research, 18: 1698-1710. Pinkel, D.; Segraves, R. [et al.] (1998). «High resolution analysis of DNA copy number variation using comparative genomic hybridization to microarrays». Nat. Genet., 20: 207-211. Pollack, J. R.; Perou, C. M. [et al.] (1999). «Genomewide analysis of DNA copy-number changes using cDNA microarrays». Nat. Genet., 23: 41-46. Redon, R.; Ishikawa, S. [et al.] (2006). «Global variation in copy number in the human genome». Nature, 444: 444-454. Roberto, R.; Capozzi, O. [et al.] (2007). «Molecular refinement of gibbon genome rearrangements». Genome Res., 17: 249-257. Saxena, R.; Voight, B. F. [et al.] (2007). «Genome-wide association analysis identifies loci for type 2 diabetes and triglyceride levels». Science, 316: 13311336. Sebat, J.; Lakshmi, B. [et al.] (2004). «Large-scale copy number polymorphism in the human genome». Science, 305: 525-528. She, X.; Cheng, Z. [et al.] (2008). «Mouse segmental duplication and copy number variation». Nat. Genet. [En premsa] She, X.; Liu, G. [et al.] (2006). «A preliminary comparative analysis of primate segmental duplications shows elevated substitution rates and a great-ape expansion of intrachromosomal duplications». Genome Res., 16: 576-583. Stefansson, H.; Helgason, A. [et al.] (2005). «A common inversion under selection in Europeans». Nat. Genet., 37: 129-137. Stranger, B. E.; Forrest, M. S. [et al.] (2007). «Relative impact of nucleotide and copy number variation on gene expression phenotypes». Science, 315: 848-853. Thomas, C. A. Jr. (1971). «The genetic organization of chromosomes». Annu. Rev. Genet., 5: 237-256. TIH Consortium64 (2005). «A haplotype map of the human genome». Nature, 437: 1299-320. Tomlinson, I.; Webb, E. [et al.] (2007). «A genome-wide
76 T. Marquès-Bonet i L. Armengol
association scan of tag SNPs identifies a susceptibility variant for colorectal cancer at 8q24.21». Nat. Genet., 39: 984-988. Tuzun, E.; Sharp, A. J. [et al.] (2005). «Fine-scale structural variation of the human genome». Nat. Genet., 37: 727-732. Venter, J. C.; Adams, M. D. [et al.] (2001). «The sequence of the human genome». Science, 291: 13041351. Ventura, M.; Antonacci, F. [et al.] (2007). «Evolutionary formation of new centromeres in macaque». Science, 316: 243-246.
Waterston, R. H.; Lindblad-Toh, K. [et al.] (2002). «Initial sequencing and comparative analysis of the mouse genome». Nature, 420: 520-562. Watson, J. D.; Crick, F. H. (1953). «Molecular structure of nucleic acids; a structure for deoxyribose nucleic acid». Nature, 171: 737-738. Yunis, J. J.; Prakash, O. (1982). «The origin of man: a chromosomal pictorial legacy». Science, 215: 15251530. Zody, M. C.; Jiang, Z. [et al.] (2008). «Evolutionary toggling of the MAPT 17q21.31 inversion region». Nat. Genet. Nature Genetics, 40: 1076-1083
Taula suplementària. Treballs que han identificat regions variants de nombre de còpia Autor de la publicació Sasso et al.
Núm. CNV 1
McLellan et al.
Any
Metodologia 1
PubMedID
Títol del treball
1995
RFLP + PCR
7657830
1
1997
RFLP + PCR
9415705
Small et al.
2
1997
RFLP + PCR
9140403
Blanchong et al.
1
2000
RFLP + PCR
10859342
Franchina et al.
1
2000
Diversa 2
10799969
Gilles et al.
1
2000
Diversa
11161787
Osborne et al.
2
2001
Diversa
11685205
Robledo et al.
1
2002
Diversa
12504850
Townson et al.
1
2002
Diversa
12355456
Ethnic differences of polymorphism of an immunoglobulin VH3 gene Frequent occurrence of CYP2D6 gene duplication in Saudi Arabians Emerin deletion reveals a common X-chromosome inversion mediated by inverted repeats. Deficiencies of human complement component C4A and C4B and heterozygosity in length variants of RP-C4-CYP21-TNX (RCCX) modules in caucasians. The load of RCCX genetic diversity on major histocompatibility complex-associated disease. Allele-specific variation in the gene copy number of human cytosine 5-methyltransferase. dCloning and characterization of a Golgin-related gene from the large-scale polymorphism linked to the PML gene A 1.5 million-base pair inversion polymorphism in families with Williams-Beuren syndrome A 9.1-kb gap in the genome reference map is shown to be a stable deletion/insertion polymorphism of ancestral origin. Gene copy number regulates the production of the human chemokine CCL3-L1
Estructura del genoma 77
Autor de la publicació Yu et al.
Núm. CNV 1
Giglio et al.
Any
Metodologia 1
PubMedID
Títol del treball
2002
Diversa
12058345
4
2002
Diversa
12058347
Hikami et al.
1
2003
Diversa
12618865
Hollox et al.
1
2003
Diversa
12916016
Milunski et al.
1
2003
CGH 3 + FISH
14986831
Vissers et al.
1
2003
aCGH
14628292
Gimelli et al.
2
2003
Diversa
12668608
Conrad et al.
1
2004
PCR
15160257
Fredman et al.
2
2004
Genotipatge de SNP
15247918
Martin et al.
2
2004
Diversa
15616553
Shaw-Smith et al.
5
2004
aCGH
15060094
Sebat et al.
79
2004
aCGH
15273396
Presence of large deletions in kindreds with autism. Heterozygous submicroscopic inversions involving olfactory receptor-gene clusters mediate the recurrent t(4;8)(p16;p23) translocation Variations of human killer cell lectin-like receptors: common occurrence of NKG2-C deletion in the general population. Extensive normal copy number variation of a beta-defensin antimicrobial-gene cluster. Unmasking Kabuki syndrome: chromosome 8p22-8p23.1 duplication revealed by comparative genomic hybridization and BACFISH Array-based comparative genomic hybridization for the genomewide detection of submicroscopic chromosomal abnormalities. Genomic inversions of human chromosome 15q11-q13 in mothers of Angelman syndrome patients with class II (BP2/3) deletions Novel procedures for highthroughput analysis of a frequent insertion-deletion polymorphism in the human T-cell receptor beta locus. Complex SNP-related sequence variation in segmental genome duplications The sequence and analysis of duplication-rich human chromosome 16. Microarray based comparative genomic hybridisation (arrayCGH) detects submicroscopic chromosomal deletions and duplications in patients with learning disability/mental retardation and dysmorphic features. Large-scale copy number polymorphism in the human genome.
78 T. Marquès-Bonet i L. Armengol
Autor de la publicació Iafrate et al.
Núm. CNV 190
Aldred et al.
Any
Metodologia 1
PubMedID
Títol del treball
2004
aCGH
15286789
1
2005
Diversa
15944200
Jobanputra et al.
1
2005
ROMA 4
15714078
Le Caignec et al.
1
2005
aCGH
15689449
Stefansson et al. Feuk et al.
2
2005
15654335
4
2005
Genotipatge de SNP Computacional 5
Bejjani et al.
6
2005
aCGH
15723295
Hinds et al.
25
2005
SNP + computacional
16327809
Sharp et al.
160
2005
aCGH
15918152
Tuzun et al.
297
2005
15895083
McCarroll et al.
495
2005
Conrad et al.
544
2005
Seqüenciació + computacional SNPs + computacional SNP + computacional
Gilling et al.
2
2006
Diversa
16642442
Urban et al.
10
2006
aCGH
16537408
Locke et al.
253
2006
aCGH
16826518
Detection of large-scale variation in the human genome. Copy number polymorphism and expression level variation of the human alpha-defensin genes DEFA1 and DEFA3 Application of ROMA (representational oligonucleotide microarray analysis) to patients with cytogenetic rearrangements. Detection of genomic imbalances by array based comparative genomic hybridisation in fetuses with multiple malformations. A common inversion under selection in Europeans. Discovery of human inversion polymorphisms by comparative analysis of human and chimpanzee DNA sequence assemblies. Use of targeted array-based CGH for the clinical diagnosis of chromosomal imbalance: is less more? Common deletions and SNPs are in linkage disequilibrium in the human genome. Segmental duplications and copynumber variation in the human genome. Fine-scale structural variation of the human genome. Common deletion polymorphisms in the human genome. A high-resolution survey of deletion polymorphism in the human genome. Breakpoint cloning and haplotype analysis indicate a single origin of the common Inv(10)(p11.2q21.2) mutation among northern Europeans. High-resolution mapping of DNA copy alterations in human chromosome 22 using high-density tiling oligonucleotide arrays. Linkage disequilibrium and heritability of copy-number polymorphisms within duplicated regions of the human genome.
16254605
16468122 16327808
Estructura del genoma 79
Autor de la publicació Mills et al.
Núm. CNV 1304
Redon et al.
Any
Metodologia 1
PubMedID
Títol del treball
2006
Computacional
16902084
1892
2006
aCGH + aCGI
17122850
Zogopoulos et al.
255
2007
aCGI
17638019
Simon-Sanchez et al.
256
2007
aCGI
17116639
Levy et al.
728
2007
17803354
Korbel et al.
881
2007
Wong et al.
1005
2007
Seqüenciació Sanger + computacional Ultraseqüenciació + computacional aCGH
An initial map of insertion and deletion (INDEL) variation in the human genome. Global variation in copy number in the human genome. Germ-line DNA copy number variation frequencies in a large North American population. Genome-wide SNP assay reveals structural genomic variation, extended homozygosity and cellline induced alterations in normal individuals The diploid genome sequence of an individual human.
de Smith et al.
1034
2007
aCGH
17666407
Pinto et al.
1044
2007
aCGI
17911159
Wang et al.
1296
2007
aCGI
17921354
Jakobsson et al.
785
2008
aCGI
18288195
Kidd et al.
2725
2008
18451855
Perry et al.
2832
2008
Ultraseqüenciació + computacional aCGH
Shen et al.
94
2008
aCGI
18373861
Total no superposats
17735
Agost 2008
17901297
17160897
18304495
Paired-end mapping reveals extensive structural variation in the human genome. A comprehensive analysis of common copy-number variations in the human genome Array CGH analysis of copy number variation identifies 1284 new genes variant in healthy white males: implications for association studies of complex diseases. Copy-number variation in control population cohorts. PennCNV: an integrated hidden Markov model designed for highresolution copy number variation detection in whole-genome SNP genotyping data. Genotype, haplotype and copynumber variation in worldwide human populations. Mapping and sequencing of structural variation from eight human genomes. The fine-scale and complex architecture of human copy-number variation. Improved detection of global copy number variation using high density, non-polymorphic oligonucleotide probes.
80 T. Marquès-Bonet i L. Armengol Informació extreta parcialment de la base de dades Database of Genomic Variants (http://projects.tcag.ca/variation/). El sumatori no coincideix amb la suma de les variants estructurals individuals identificades en cada estudi perquè la suma reflecteix només les variants no superposades. Per a la identificació de CNV s’han emprat tecnologies molt diverses al llarg del temps. 1 RFLP: de l’anglès restriction fragment length polymorphism (fragments de restricció de longitud variable). 2 Diversa: fa referència a la utilització de diferents metodologies de biologia molecular, com poden ser les transferències Southern, les electroforesis de camps polsants (o PFGE) i els RFLP, entre d’altres. 3 CGH: hibridació genòmica comparada. 4 ROMA: representational oligonucleotide microarray analysis és un tipus de CGH sobre microxips. 5 Computacional: fa referència a diferents aproximacions basades en algorismes bioinformàtics.
DOI: 10.2436/20.1501.02.78
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 81-92
ELEMENTS TRANSPOSABLES, DE L’EXCEPCIÓ A LA NORMA Ferran Casals Centre de Recherche, CHU Sainte-Justine, Universitat de Mont-real, Mont-real, Quebec, Canadà. Adreça per a la correspondència: Ferran Casals. Centre de Recherche, CHU SainteJustine, Universitat de Mont-real. 3175 Côte Sainte-Catherine, Mont-real, Quebec. H3T 1C5, Canadà. Adreça electrònica: ferran.casals.lopez@umontreal.ca. RESUM Els elements transposables són seqüències amb la capacitat de canviar la seva posició en el genoma. Són uns components molt abundants, que en el cas del genoma humà representen fins al 50 % del genoma. Tot i la seva gran diversitat, es poden agrupar en dos grans tipus, segons el seu mecanisme de mobilització. Essencialment són considerats paràsits intracel·lulars, amb una gran habilitat per replicar-se i evitar ser eliminats per l’hoste. A més de mobilitzar-se dins del genoma i transmetre’s verticalment a la descendència, molts elements transposables han estat capaços de saltar la barrera de les espècies i transferir-se horitzontalment entre els genomes. La genètica ha desenvolupat diferents mètodes per detectar els elements transposables dins de les seqüències genòmiques i estudiar-ne el comportament, tant dins com entre les espècies. En alguns casos el genoma ha domesticat un element transposable, que desenvolupa una funció cel·lular. Finalment, constitueixen una font de variabilitat, que és la matèria primera per a l’evolució de les espècies. Paraules clau: elements transposables, transposons, retrotransposons, genoma, selecció natural. TRANSPOSABLE ELEMENTS: FROM EXCEPTION TO NORM SUMMARY Transposable elements are sequences with the ability to change their position in the genome. They are very abundant, representing up to 50% of the sequence in the case of the human genome. In spite of their high diversity they can be grouped into two big classes, according to their mechanism of mobilization. They are essentially considered to be intracellular parasites, with a great ability to replicate and to avoid elimination by the host.
82 F. Casals
Besides mobilizing inside the genome and being vertically transmitted to descendants, several transposable elements have been able to cross the species borders, horizontally transmitting across genomes. Genetics has developed different methods to detect transposable elements in genome sequences, as well as to study their behavior within and between species. In some cases genomes have been able to domesticate some of them, those that are developing cellular functions. Finally, they are a source of variability, the raw material for the evolution of species. Key words: transposable elements, transposons, retrotransposons, genome, natural selection. INTRODUCCIÓ L’any 1948 Barbara McClintock va descriure per primera vegada els elements transposables. Es tractava de dos elements «controladors» que tenien la capacitat de canviar la seva posició en el cromosoma, i afectaven així la coloració dels grans de blat de moro (McClintock, 1950). Inicialment els seus resultats no van ser molt ben rebuts per la comunitat científica, ja que posaven en dubte la idea del genoma com una col· lecció de gens amb una posició fixa en els cromosomes. Va ser a principis dels anys setanta quan, amb l’aparició de la biologia molecular, es van comprendre les bases de la transposició i es van confirmar els descobriments de McClintock. L’any 1983 va rebre el Premi Nobel pel descobriment de la transposició genètica. Tot i que el nombre d’elements transposables descrits augmentava, així com les proves que el genoma contenia una fracció molt important de DNA repetitiu, els elements transposables van seguir sent considerats durant força temps una raresa, una petita excepció al comportament de la resta dels elements del genoma, amb una posició fixa en els cromosomes. Actualment, quan encara estem digerint la gran quantitat de dades que les noves tecnologies de la biologia molecular ens han proporcionat i que ha tingut un dels punts culminants en la seqüenciació de genomes sencers, sabem que
els elements transposables són uns components extremadament abundants dels genomes (vegeu la taula 1). Els elements transposables s’han descrit pràcticament en tots els genomes eucariotes totalment o parcialment analitzats. Curiosament, fins ara l’única excepció és el paràsit causatiu de la malària, Plasmodium falciparum (Gardner et al., 2002). Per a la resta d’organismes, l’abundància d’elements transposables és molt variable, i arriba a representar fins al 80 % del genoma en algunes plantes. De fet, cal interpretar els valors obtinguts com a subestimes del contingut real d’elements transposables per dos motius. En primer lloc, les regions heterocromàtiques del genoma són difícils de seqüenciar, i els genomes «complets» de què disposem no contenen una part important d’aquestes seqüències. Com veurem més endavant, aquestes regions contenen molts elements transposables. En segon lloc, els genomes contenen moltes còpies inactives o «fòssils» d’elements transposables, insercions antigues que han acumulat mutacions i han perdut la capacitat de mobilitzar-se. Algunes d’aquestes còpies estan tan degenerades que són difícilment recognoscibles per homologia amb altres elements, i no han estat comptades com a DNA procedent d’elements transposables.
Elements transposables, de l’excepció a la norma 83 Taula 1. Abundància dels elements transposables en diferents espècies amb els genomes seqüenciats
Espècie Sacharomyces cerevisiae Caenorhabditis elegans 2 Arabidopsis thaliana 3 Drosophila melanogaster 4 Mus musculus 5 Homo sapiens 6 1
Genoma (Mb)
Còpies ET
Total ET
12 97 125 137 2.700 2.900
331 3.718 5.602 1.572 2,9 × 10⁶ 3,2 × 10⁶
3,1 6,5 14 3,1 38,6 44,4
% del genoma Classe i Classe i LTR no LTR 3,1 0 0,1 0,4 6,4 0,7 1,5 0,7 9,9 27,4 8,1 33,4
Classe ii 0 5,3 6,8 0,7 0,9 2,8
ET: element transposable. 1 (Kim et al., 1998); 2 (Duret et al., 2000); 3 (The Arabidopsis Genome Initiative, 2000); (Kaminker et al., 2002); 5 (Waterston et al., 2002); 6 (Lander et al., 2001).
4
TIPUS D’ELEMENTS TRANSPOSABLES Els elements transposables s’han classificat segons el seu mecanisme de transposició en dos grans grups: elements de classe i o retrotransposons, i elements de classe ii o transposons (Finnegan, 1989) (vegeu la figura 1). Tot i l’aparició d’alguns nous tipus d’elements transposables, aquesta separació en dos grans grups continua vigent (Wicker et al., 2007). En general els elements de classe i són més abundants, però la distribució de les famílies d’elements transposables canvia molt entre les espècies, i es troben sovint elements molt freqüents en algunes espècies que pràcticament no es troben en altres. Un aspecte comú als diferents tipus d’element és que sovint produeixen una petita duplicació als dos costats de l’element de la seqüència on s’insereixen (vegeu la figura 2). La longitud d’aquesta duplicació és característica de cada element, i es produeix perquè els enzims encarregats de la inserció de l’element produeixen extrems cohesius en tallar la cadena de DNA, que després de la inserció seran reomplerts per una polimerasa. Els elements de classe i es transposen per replicació, mitjançant un intermediari de RNA que es retrotranscriu abans de la no-
va inserció (mecanisme DNA-RNA-DNA). Un cop l’element ha estat transcrit a RNA, una retrotranscriptasa en torna a produir una còpia de DNA, llesta per tornar a inserir-se en el genoma. Aquest mecanisme de transposició és un mecanisme replicatiu, en què la inserció original de l’element no s’escindeix. Per tant, el nombre d’elements d’aquesta classe augmenta després de la transposició. Aquests elements s’han trobat majoritàriament en eucariotes, on solen ser el tipus majoritari d’elements transposables. Els elements de classe i se subdivideixen en dues classes més, segons la presència o no de repeticions llargues invertides (LTR) als dos extrems de l’element. L’estructura dels retrotransposons amb LTR és similar a la dels retrovirus. La seva mida és relativament gran, habitualment 59 kb. Els LTR tenen una mida de 250-600 pb, i envolten una regió que conté dos marcs de lectura oberts (ORF) homòlegs als dominis codificants gag i pol dels retrovirus (Capy et al., 1998) que codifiquen les proteïnes necessàries per al procediment de mobilització d’aquests elements. És, doncs, molt evident la relació evolutiva existent entre els retrovirus i aquests elements, que molt probablement s’han originat a partir de retrovirus que han perdut la capacitat de mobilitzar-se i infectar noves cèl·lules. D’altra
84 F. Casals
banda, els retrotransposons sense LTR es divideixen en dues classes més, LINE i SINE, i són components extremadament abundants d’alguns genomes. Els LINE solen contenir els ORF que els permeten mobilitzar-se, i presenten unes seqüències riques en adenosines a l’extrem 3´. La seva mida és de 5-8 kb, però sovint les còpies estan delecionades en l’extrem 5´. Aquests elements delecionats sovint no es poden mobilitzar ni en presència dels enzims produïts per altres elements complets, ja que han perdut seqüències necessàries per a la retrotranscripció. El genoma humà conté més de mig milió de còpies de l’element LINE L1. Els SINE generalment tenen una mida inferior a 500 pb. La majoria d’aquests elements provenen de gens de RNA de transferència, excepte els de la família Alu/B1 de mamífers, que provenen d’un pseudogèn processat del gen 7SL RNA, un component citoplasmàtic essencial per reconèixer i eliminar els senyals peptídics de les proteïnes. Els SINE no contenen cap ORF que codifi-
qui proteïnes que permetin la seva transposició, i sembla que utilitzen els enzims produïts pels elements LINE. L’element SINE Alu és també extraordinàriament freqüent en el genoma humà, que en conté més d’un milió de còpies. Els elements de classe ii es transposen per escissió directa, sense utilitzar cap intermediari (mecanisme DNA-DNA). Principalment es mobilitzen seguint un procediment de «tallar i enganxar», en què l’element s’escindeix del lloc original i s’insereix en qualsevol altre lloc del genoma. Tot i ser un mecanisme no replicatiu alguns elements de classe ii també augmenten en nombre durant la transposició. Aquests elements es transposen durant la síntesi de DNA, i es mouen de DNA replicat a DNA no replicat. La classe ii és força heterogènia, i la mida dels elements generalment és inferior a la dels elements de classe i. Estructuralment la seva característica principal és la presència de repeticions terminals invertides (ITR). Els ITR solen tenir una mida inferior
Classe 1 SINE
LINE
Retrotransposons amb LTR
Classe 2
Figura 1. Esquema dels diferents tipus d’elements transposables. RT: retrotranscriptasa.
Elements transposables, de l’excepció a la norma 85
als 50 pb. La regió central de l’element habitualment conté un ORF que codifica una transposasa. Aquest enzim i els ITR són suficients per a la transposició. Molts elements de classe ii presenten nombroses delecions, i sovint mantenen els seus extrems però no la seqüència completa de la transposasa. Aquests elements no autònoms poden ser mobilitzats per la transposasa codificada per altres elements. COM ES PODEN DETECTAR ELS ELEMENTS TRANSPOSABLES? Les seqüències repetitives, incloent-hi els elements transposables, són un dels majors problemes trobats a l’hora de seqüenciar, anotar o alinear genomes. Per això, en els darrers anys s’han desenvolupat diferents eines bioinformàtiques per a la detecció d’elements transposables en les seqüències genòmiques (Bergman i Quesneville, 2007). El més habitual és cercar la seqüència d’un element descrit en una espècie en les seqüències genòmiques d’altres espècies. És, per tant, un mètode basat en l’homologia de les seqüències de DNA o de proteïna, amb l’inconvenient que majoritàriament només s’obtindran elements ja descrits i encara actius, ja que hauran mantingut la semblança de les seqüències. Un altre tipus de mètode es basa en la cerca d’estructures típiques dels elements transposables, per exemple la presència de LTR o ITR properes. Aquestes cerques permeten la detecció d’elements ja coneguts i també de nous, ja que no és necessària la conservació de la seqüència entre espècies. Però per descriure nous elements el més habitual són estratègies basades en la natura repetitiva dels elements transposables. La més utilitzada es basa en la detecció de parelles de seqüències similars en diferents llocs del genoma, i a partir d’aquestes se’n
poden buscar d’altres. Aquesta aproximació té, però, alguns problemes, com la detecció d’elements amb molt baix nombre de còpies, per exemple aquells amb només una còpia en el genoma, i l’obtenció d’altres seqüències repetitives, com duplicacions segmentals o seqüències satèl·lit. Finalment, també s’utilitza la genòmica comparativa, és a dir, l’alineament de seqüències procedents de diferents espècies. En aquest cas, es tracta d’analitzar les posicions on els alineaments múltiples es trenquen, a causa d’una inserció en alguna de les seqüències. L’alineament de totes les insercions permet detectar seqüències repetitives, probablement elements transposables (Caspi i Pachter, 2006). La gran quantitat de dades sobre genomes seqüenciats completament, amb diferents nivells de qualitat fa molt recomanable no confiar únicament en un dels mètodes i combinar les diferents aproximacions presentades, i així es minimitza el risc de no detectar alguns elements i s’augmenta la fiabilitat dels resultats. LES CLAUS DE L’ÈXIT Hem vist que els elements transposables són components molt abundants del genoma, amb alguns elements que poden a arribar a tenir milions de còpies en els cromosomes d’una espècie. Com han aconseguit aquest èxit evolutiu? Una possible explicació seria que no tinguin cap efecte sobre el genoma hoste. Però sembla molt improbable que la presència d’uns elements capaços de mobilitzar-se en el genoma no tinguin cap conseqüència. Imaginem-nos, per exemple, que un element s’insereix dins de la regió codificant d’un gen. El més possible és que aquest gen perdi la seva funcionalitat, i això ben segur que tindrà conseqüències negatives per a l’organisme. Per tant, cal esperar que la majoria dels elements
86 F. Casals
transposables tinguin un efecte negatiu sobre els hostes, causat per la seva presència o mobilització. No cal que afecti una regió codificadora per tenir efectes perjudicials, ja que la inserció en altres regions com introns, on podria afectar el processament de l’RNA, o en seqüències reguladores del gen, on modificaria el seu patró d’expressió, pot tenir també conseqüències greus. A més, els elements transposables poden conferir al genoma certa inestabilitat, poden produir talls a la cadena de DNA com a conseqüència de la seva mobilització i poden arribar a produir reordenacions cromosòmiques. Així doncs, el més correcte sembla considerar els elements transposables com paràsits intracel·lulars, que utilitzen la maquinària cel·lular per replicar-se i incrementar el seu nombre de còpies en el genoma. És el que es va anomenar DNA egoista (Doolittle i Sapienza, 1980; Orgel i Crick, 1980). Per tant, els elements transposables estaran sota diferents pressions selectives: les de l’hoste, que intentarà eliminar-los del seu genoma, Figura 1 iEsquema les dels que afavoreixen altes RT, taxes d’inserció diferents tipus d’elements transposables. retrotranscriptasa.
Figura 2. Generació de seqüències genòmiques duplicades com a resultat de la inserció d’un element transposable.
de l’element que li garanteixin no ser eliminat, tot i que sense arribar a nivells massa alts que puguin comprometre la viabilitat de l’hoste. La clau de l’èxit evolutiu dels elements transposables és l’estabilització d’un nombre de còpies suficientment elevat per evitar-ne la desaparició però suficientment baix per minimitzar els efectes sobre l’hoste. Un exemple d’aquesta interacció entre l’hoste i els elements transposables, descrit entre molts altres en els elements LINE dels humans (Moran i Gilbert, 2002), és el fet que l’activitat dels elements té lloc majoritàriament a les cèl·lules germinals, ja que l’activitat en cèl·lules somàtiques podria tenir efectes més greus per a l’hoste. Evitant la selecció natural L’anàlisi de la distribució cromosòmica dels elements transposables ens mostra la intensitat de les forces selectives que actuen sobre aquests. Per estudiar-la Drosophila segueix sent un organisme model excepcional. Les eines citològiques desenvolupades per a l’estudi d’aquest organisme ens permeten estudiar la distribució dels elements per tot el genoma, incloent-hi part de l’heterocromatina. La densitat d’elements transposables canvia a les diferents regions dels cromosomes de D. melanogaster (Adams et al., 2000; Kaminker et al., 2002), i augmenta a les regions pericentromèriques riques en heterocromatina. De fet, el 50 % de les seqüències heterocromàtiques tenen homologia amb seqüències d’elements transposables (Hoskins et al., 2002). Per què s’acumulen els elements transposables en aquestes regions? En aquestes zones no hi ha recombinació durant la meiosi, o ho fa a uns nivells molt baixos. Això afavoreix l’acumulació d’elements transposables perquè seran més difícils d’eliminar per part de la selecció natural. Si una còpia
Elements transposables, de l’excepció a la norma 87
d’un element transposable té un efecte negatiu sobre l’hoste, la selecció natural intentarà eliminar-la. És obvi que si l’efecte de la inserció és molt greu, aquella còpia serà efectivament eliminada per la selecció, ja que l’individu portador tindrà menys eficàcia biològica. Però si l’efecte és només lleugerament perjudicial, i a més l’element es troba en una regió de baixa recombinació, la selecció natural serà poc eficient, ja que la inserció de l’element anirà lligada a altres variants, algunes amb efectes beneficiosos, i podrà escapar de la selecció (Gordo i Charlesworth, 2001; Hill i Robertson, 1966). A més, aquests elements també evitaran la recombinació ectòpica entre diferents còpies de l’element, que, com veurem més endavant, pot produir reordenacions cromosòmiques amb un efecte que normalment serà perjudicial per a l’hoste, i per tant comportarà l’eliminació de l’element (Langley et al., 1988). També cal tenir en compte que en aquestes regions la probabilitat d’inserir-se dins de gens o seqüències reguladores és més baixa que a la resta del cromosoma, ja que la densitat gènica és menor. Per tant, la baixa densitat gènica podria ser el factor que determinés l’acumulació dels elements transposables en regions de baixa recombinació. Però les dades obtingudes en el cromosoma 4 de D. melanogaster 1
2
s’oposen a aquesta hipòtesi. En aquest cromosoma no hi ha recombinació, i també conté més elements que els esperats, mentre que la seva densitat gènica és similar a la trobada a les regions d’alta recombinació dels altres autosomes (Charlesworth et al., 1992). Transferència horitzontal Una altra particularitat dels elements transposables, i que sens dubte ha afavorit la seva abundància, és la seva capacitat de passar dels genomes d’una espècie als d’altres espècies, fet que s’ha anomenat transferència horitzontal (Capy et al., 1998). Perquè es produeixi transferència horitzontal és necessari que l’àrea de distribució de les dues espècies coincideixi, almenys parcialment, així com que hi hagi també una certa superposició ecològica o temporal. En segon lloc, cal que l’element s’insereixi en cèl·lules de la línia germinal, ja que si només s’insereix en cèl·lules somàtiques no es transmetrà a la descendència, i per tant no es podrà estendre a altres individus de la població. I també és necessari que existeixi un vector capaç de transferir DNA de l’espècie donadora a la l’espècie receptora. Excepcionalment, s’han descrit alguns 3
Figura 3. Diferents mètodes per determinar si un element transposable s’ha transmès horitzontalment. Els arbres obtinguts amb seqüències genòmiques es dibuixen en negre, i els obtinguts amb seqüències d’elements transposables en gris. Les fletxes verticals indiquen la presència de l’element transposable en una espècie. A: distribució discontínua entre les espècies (a, b, c, d i e); B: temps de divergència dels elements transposables menor al temps de divergència entre les espècies; C: incongruència entre les filogènies obtingudes amb seqüències genòmiques o amb els elements transposables.
88 F. Casals
casos de transferència horitzontal entre espècies properes sense l’existència de vectors. És el cas de l’element gypsy, un retrotransposó amb LTR de D. melanogaster que ha protagonitzat diferents esdeveniments de transmissió horitzontal en altres espècies del seu gènere (Heredia et al., 2004). Aquest element pot comportar-se com un retrovirus, ja que el seu gen env codifica una proteïna que el pot transportar produint partícules similars a les víriques, que el capaciten per inserir-se al genoma d’altres espècies de Drosophila (Mejlumian et al., 2002). Però per a la majoria d’elements transposables cal que existeixi un vector extern. Hi ha diferents possibilitats: alguns elements s’inteRecombinació ectòpica
gren en el DNA d’un virus de DNA, que actua com a llançadora entre les dues espècies (Miller i Miller, 1982); altres utilitzen paràsits com els àcars, que, foradant i succionant els ous i les larves, fan de vector entre diferents espècies de Drosophila (Houck et al., 1991); i altres han passat des d’espècies de Drosophila al genoma de vespes parasitoides (Yoshiyama et al., 2001). L’hoste també pot adquirir seqüències de DNA de simbionts intracel·lulars, com s’ha comprovat en Drosophila i el seu endosimbiont Wolbachia (Hotopp et al., 2007), un procariota que també pot intercanviar seqüències de DNA mitjançant l’acció dels bacteriòfags (Gavotte et al., 2007). Inserció híbrida
Figura 4. Models proposats per explicar la generació d’una inversió cromosòmica per elements transposables. Es representen les dues cromàtides germanes. Les fletxes de dues puntes són elements transposables. Les fletxes horitzontals a sota dels elements n’indiquen la orientació. Els cercles i quadrats col·locats als extrems són les duplicacions que produeixen en inserir-se
Elements transposables, de l’excepció a la norma 89
La transmissió horitzontal es pot detectar de diferents maneres (Loreto et al., 2008; Silva et al., 2004) (vegeu la figura 3). Una primera aproximació, la més senzilla, és la detecció de distribucions discontínues dels elements transposables. Es tracta de trobar el mateix element en clades o grups d’espècies separats filogenèticament, sense que es trobi en espècies més properes. Això es podria explicar pel salt d’un element d’unes espècies a unes altres. Tot i això, aquesta distribució també pot ser el resultat de la pèrdua per atzar de l’element en algunes espècies i, per tant, no és un mètode concloent de l’existència de transmissió horitzontal. El segon mètode es basa en la comparació de la divergència entre seqüències del genoma hoste i la divergència entre els elements transposables descrits en diferents genomes. Els dos valors de divergència haurien de ser similars, però en el cas de transmissió horitzontal la divergència entre els elements transposables seria menor que la divergència entre els genomes hoste. L’arbre filogenètic de les espècies obtingut a partir de les seqüències de l’element tindria les branques més curtes, ja que la separació entre les seves còpies seria posterior a la separació de les espècies. Tot i això, cal tenir en compte que un baix nivell de divergència entre els elements transposables també pot ser degut a l’existència de pressions selectives que actuïn sobre aquests (Silva i Kidwell, 2000). Finalment, el tercer mètode es basa en la comparació dels arbres filogenètics obtinguts amb seqüències de les espècies hoste i amb seqüències dels elements transposables. Si hi ha hagut transmissió horitzontal la topologia dels dos arbres filogenètics pot ser força diferent. L’anàlisi molecular de diverses famílies d’elements transposables descrites en el genoma de D. melanogaster, i la seva comparació amb seqüències homòlogues trobades en D. simulans i D. yakuba, ha mostrat que la
transmissió horitzontal no és un fenomen aïllat i ha afectat moltes famílies d’elements transposables (Sanchez-Gracia et al., 2005). S’han descrit esdeveniments de transmissió horitzontal tant en elements de classe i com de classe ii, però els elements de classe ii semblen més propensos a transmetre’s horitzontalment. Això està probablement relacionat amb l’existència d’intermediaris de DNA durant la transposició, els quals tenen més estabilitat que l’RNA (Hua-Van et al., 2005). L’RNA es degrada més fàcilment i molt ràpidament, i fa més difícil la seva transferència entre cèl·lules. Efectes beneficiosos dels elements transposables La universalitat i abundància dels elements transposables també ha estat interpretada en alguns casos com una indicació de la seva funcionalitat; tot i ser fenòmens minoritaris, en alguns casos s’ha demostrat que els elements transposables poden tenir efectes beneficiosos per a l’hoste (Kidwell i Lisch, 2000). Un dels millors exemples és la implicació d’alguns retroelements en el manteniment dels telòmers dels cromosomes. Mentre que en la majoria d’espècies estudiades la telomerasa és l’encarregada principal del seu manteniment, en Drosophila aquesta funció l’han assumida dos retroelements sense LTR (Pardue i DeBaryshe, 2003). Un altre exemple dels efectes beneficiosos dels elements transposables és el seu paper en la reparació de trencaments cromosòmics descrits en Saccharomyces cerevisiae (Teng et al., 1996). Finalment, les seqüències reguladores que contenen els elements transposables també poden ser utilitzades pels genomes hostes (Britten, 1997). Algunes insercions antigues d’elements que han perdut la capacitat per mobilitzar-se proporcionen elements reguladors per al
90 F. Casals
genoma. Són elements «domesticats» pel genoma, com en el cas de l’apolipoproteïna a humana, amb una d’aquestes seqüències situada a 20 kb del gen dins d’un element LINE (Yang et al., 1998). Generadors de reordenacions cromosòmiques Els elements transposables són una font de variabilitat, i contribueixen a la generació de mutacions, algunes de les quals poden resultar beneficioses per a les espècies. A més del seu possible efecte insercional, per exemple amb la modificació dels patrons d’expressió d’un gen, poden originar reordenacions cromosòmiques, com delecions, duplicacions, inversions i translocacions (Berg i Howe, 1989). El paper dels elements transposables en la generació d’inversions cromosòmiques ha estat àmpliament demostrat. Els dos models més acceptats que expliquen com els elements transposables poden generar inversions cromosòmiques són el model de recombinació ectòpica (Lim i Simmons, 1994), i el model d’inserció híbrida (Gray, 2000) (vegeu la figura 4). La recombinació ectòpica o no al·lèlica es produeix entre seqüències homòlogues localitzades en diferents posicions del cromosoma, probablement per un mecanisme similar al de la recombinació al·lèlica, que es dóna entre els cromosomes homòlegs durant la meiosi. La recombinació ectòpica es pot produir entre qualsevol tipus de seqüència repetitiva, com gens de RNA ribosòmic o de transferència, duplicacions, gens de famílies multigèniques, repeticions de DNA centromèric o telomèric, o elements transposables. És, per tant, una conseqüència de la natura repetitiva dels elements transposables. A més, l’activitat dels elements transposables produeix tren-
caments de cadena senzilla i de doble cadena en el DNA, que poden afavorir la recombinació entre aquests. L’altre mecanisme amb el qual s’ha proposat que els elements mòbils poden generar inversions, la inserció híbrida, és força diferent, i és una conseqüència de la capacitat de mobilitzar-se dels elements. Després de la inserció d’un element mòbil i de la replicació del DNA hi haurà un element idèntic a les dues cromàtides germanes. Aquestes dues còpies poden participar en un procés de transposició inusual, en què un element híbrid format per un extrem de cada element es mobilitza cap a un nou lloc del cromosoma. El resultat és una inversió del segment limitat pels dos llocs d’inserció i dues còpies de l’element transposable. Les còpies de l’element estaran flanquejades per duplicacions en la mateixa orientació que en el cas de la recombinació ectòpica. El resultat dels dos models és molt semblant, però en la recombinació ectòpica les dues còpies de l’element no són necessàriament idèntiques. Les diferents còpies d’un mateix element solen presentar petites diferències entre si, i per tant la recombinació ectòpica produirà elements híbrids o quimèrics. En canvi, en el cas de la inserció híbrida, els dos elements seran idèntics després de la generació de la inversió. Posteriorment les dues còpies poden divergir a causa de la fixació de mutacions. Per a la majoria de casos en què s’ha determinat que un element transposable ha estat implicat en la generació d’una inversió cromosòmica, el mecanisme proposat ha estat la recombinació ectòpica. És el cas d’una inversió polimòrfica descrita en el cromosoma X d’humans (Small et al., 1997), i una inversió del cromosoma Y fixada després de la divergència entre els humans i el ximpanzé que va aparèixer per recombinació entre dos elements LINE (Schwartz et al., 1998). En D. buzzatii s’ha demostrat que
Elements transposables, de l’excepció a la norma 91
el mateix element transposable ha generat almenys dues inversions polimòrfiques (Caceres et al., 1999; Casals et al., 2003). En conclusió, els elements transposables no són una excepcionalitat, sinó components majoritaris i molt antics del genoma. Són, per tant, un objecte d’estudi essencial per entendre la composició, l’estructura i l’evolució dels genomes de les espècies. Podem considerar-los majoritàriament com paràsits intracel·lulars, amb una gran capacitat per replicar-se i mobilitzar-se, que ha fet que les espècies hoste no els puguin eliminar. En alguns casos, han arribat a ser domesticats pel genoma, que ha trobat alguna funció per a aquestes seqüències foranes. Però tot i haver augmentat considerablement el nombre d’exemples d’elements que desenvolupen una funció cel·lular, continua semblant un fet força excepcional. Potser la contribució més important dels elements transposables a l’evolució dels genomes és que constitueixen una font de variabilitat, necessària per a l’evolució de les espècies. I potser el més difícil per a nosaltres és acceptar que la meitat del nostre genoma és plena de paràsits. BIBLIOGRAFIA Adams, M. D.; Celniker, S. E.; Holt, R. A. (2000). «The genome sequence of Drosophila melanogaster». Science, 287: 2185-2195. Berg, D.; Howe, M. (1989). Mobile DNA. Washington: American Society for Microbiology. Bergman, C. M.; Quesneville, H. (2007). «Discovering and detecting transposable elements in genome sequences». Brief Bioinform., 8: 382-392. Britten, R. J. (1997). «Mobile elements inserted in the distant past have taken on important functions». Gene, 205: 177-182. Caceres, M.; Ranz, J. M.; Barbadilla, A. [et al.] (1999). «Generation of a widespread Drosophila inversion by a transposable element». Science, 285: 415-418. Capy, P.; Bazin, C.; Higuet, D.; Langin, T. (1998). Dy-
namics and evolution of transposable elements. Heidelberg: Springer-Verlag. Casals, F.; Caceres, M.; Ruiz, A. (2003). «The foldback-like transposon Galileo is involved in the generation of two different natural chromosomal inversions of Drosophila buzzatii». Mol. Biol. Evol., 20: 674-685. Caspi, A.; Pachter, L. (2006). «Identification of transposable elements using multiple alignments of related genomes». Genome Res., 16: 260-270. Charlesworth, B.; Lapid, A.; Canada, D. (1992). «The distribution of transposable elements within and between chromosomes in a population of Drosophila melanogaster. I. Element frequencies and distribution». Genet. Res., 60: 103-114. Doolittle, W. F.; Sapienza, C. (1980). «Selfish genes, the phenotype paradigm and genome evolution». Nature, 284: 601-603. Duret, L.; Marais, G.; Biemont, C. (2000). «Transposons but not retrotransposons are located preferentially in regions of high recombination rate in Caenorhabditis elegans». Genetics, 156: 1661-1669. Finnegan, D. J. (1989). «Eukaryotic transposable elements and genome evolution». Trends Genet., 5: 103-107. Gardner, M. J.; Hall, N.; Fung, E. [et al.] (2002). «Genome sequence of the human malaria parasite Plasmodium falciparum». Nature, 419: 498-511. Gavotte, L.; Henri, H.; Stouthamer, R. [et al.] (2007). «A survey of the bacteriophage WO in the endosymbiotic bacteria Wolbachia». Mol. Biol. Evol., 24: 427-435. Gordo, I.; Charlesworth, B. (2001). «Genetic linkage and molecular evolution». Curr. Biol., 11: R684686. Gray, Y. H. (2000). «It takes two transposons to tango: transposable-element-mediated chromosomal rearrangements». Trends. Genet., 16: 461-468. Heredia, F.; Loreto, E. L.; Valente, V. L. (2004). «Complex evolution of gypsy in Drosophilid species». Mol. Biol. Evol., 21: 1831-1842. Hill, W. G.; Robertson, A. (1966). «The effect of linkage on limits to artificial selection». Genet. Res., 8: 269-294. Hoskins, R. A.; Smith, C. D.; Carlson, J. W. [et al.] (2002). «Heterochromatic sequences in a Drosophila whole-genome shotgun assembly». Genome Biol., 3: RESEARCH0085. Hotopp, J. C.; Clark, M. E.; Oliveira, D. C. [et al.] (2007). «Widespread lateral gene transfer from intracellular bacteria to multicellular eukaryotes». Science, 317: 1753-1756. Houck, M. A.; Clark, J. B.; Peterson, K. R. [et al.] (1991). «Possible horizontal transfer of Drosophi-
92 F. Casals
la genes by the mite Proctolaelaps regalis». Science, 253: 1125-1128. Hua-Van, A.; Rouzic, A. Le; Maisonhaute, C.; Capy, P. (2005). «Abundance, distribution and dynamics of retrotransposable elements and transposons: similarities and differences». Cytogenet. Genome Res., 110: 426-440. Kaminker, J. S.; Bergman, C. M.; Kronmiller, B. [et al.] (2002). «The transposable elements of the Drosophila melanogaster euchromatin: a genomics perspective». Genome Biol., 3: RESEARCH0084. Kidwell, M. G.; Lisch, D. R. (2000). «Transposable elements and host genome evolution». Trends. Ecol. Evol., 15: 95-99. Kim, J. M.; Vanguri, S.; Boeke, J. D. [et al.] (1998). «Transposable elements and genome organization: a comprehensive survey of retrotransposons revealed by the complete Saccharomyces cerevisiae genome sequence». Genome Res., 8: 464-478. Lander, E. S.; Linton, L. M.; Birren, B. [et al.] (2001). «Initial sequencing and analysis of the human genome». Nature, 409: 860-921. Langley, C. H.; Montgomery, E.; Hudson, R. [et al.] (1988). «On the role of unequal exchange in the containment of transposable element copy number». Genet. Res., 52: 223-235. Lim, J. K.; Simmons, M. J. (1994). «Gross chromosome rearrangements mediated by transposable elements in Drosophila melanogaster». Bioessays, 16: 269-275. Loreto, E. L.; Carareto, C. M.; Capy, P. (2008). «Revisiting horizontal transfer of transposable elements in Drosophila». Heredity, 100: 545-554. McClintock, B. (1950). «The origin and behavior of mutable loci in maize». Proc. Natl. Acad. Sci. USA, 36: 344-355. Mejlumian, L.; Pelisson, A.; Bucheton, A.; Terzian, C. (2002). «Comparative and functional studies of Drosophila species invasion by the gypsy endogenous retrovirus». Genetics, 160: 201-209. Miller, D. W.; Miller, L. K. (1982). «A virus mutant with an insertion of a copia-like transposable element». Nature, 299: 562-564. Moran, J. V.; Gilbert, N. (2002). «Mammalian LINE-1 retrotransposons and related elements». A: Craig, L. N.; Craigie, R.; Gellert, M.; Lambowitz, A. M.
[ed.]. Mobile DNA II. Washington: ASM Press, 836869. Orgel, L. E.; Crick, F. H. (1980). «Selfish DNA: the ultimate parasite». Nature, 284: 604-607. Pardue, M. L.; DeBaryshe, P. G. (2003). «Retrotransposons provide an evolutionarily robust non-telomerase mechanism to maintain telomeres». Annu. Rev. Genet., 37: 485-511. Sanchez-Gracia, A.; Maside, X.; Charlesworth, B. (2005). «High rate of horizontal transfer of transposable elements in Drosophila». Trends Genet., 21: 200-203. Schwartz, A.; Chan, D. C.; Brown, L. G. [et al.] (1998). «Reconstructing hominid Y evolution: X-homologous block, created by X-Y transposition, was disrupted by Yp inversion through LINE-LINE recombination». Hum. Mol. Genet., 7: 1-11. Silva, J. C.; Kidwell, M. G. (2000). «Horizontal transfer and selection in the evolution of P elements». Mol. Biol. Evol., 17: 1542-1557. Silva, J. C.; Loreto, E. L.; Clark, J. B. (2004). «Factors that affect the horizontal transfer of transposable elements». Curr. Issues. Mol. Biol., 6: 57-71. Small, K.; Iber, J.; Warren, S. T. (1997). «Emerin deletion reveals a common X-chromosome inversion mediated by inverted repeats». Nat. Genet., 16: 9699. Teng, S. C.; Kim, B.; Gabriel, A. (1996). «Retrotransposon reverse-transcriptase-mediated repair of chromosomal breaks». Nature, 383: 641-644. The Arabidopsis Genome Initiative, (2000). «Analysis of the genome sequence of the flowering plant Arabidopsis thaliana». Nature, 408: 796-815. Waterston, R. H.; Lindblad-Toh, K.; Birney, E. [et al.] (2002). «Initial sequencing and comparative analysis of the mouse genome». Nature, 420: 520-562. Wicker, T.; Sabot, F.; Hua-Van, A. [et al.] (2007). «A unified classification system for eukaryotic transposable elements». Nat. Rev. Genet., 8: 973-982. Yang, Z.; Boffelli, D.; Boonmark, N. [et al.] (1998). «Apolipoprotein(a) gene enhancer resides within a LINE element». J. Biol. Chem., 273: 891-897. Yoshiyama, M.; Tu, Z.; Kainoh, Y. [et al.] (2001). «Possible horizontal transfer of a transposable element from host to parasitoid». Mol. Biol. Evol., 18: 19521958.
DOI: 10.2436/20.1501.02.79
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 93-102
POLIMORFISME NUCLEOTÍDIC I CANVIS ADAPTATIUS RECENTS Montserrat Aguadé Departament de Genètica, Facultat de Biologia, Universitat de Barcelona. Adreça per a la correspondència: Montserrat Aguadé. Departament de Genètica, Facultat de Biologia, Universitat de Barcelona. Diagonal, 645. 08028 Barcelona. Adreça electrònica: maguade@ub.edu. RESUM En observar els individus d’una espècie es detecten característiques que els fan estar especialment adaptats al medi biòtic i abiòtic en què es troben. La selecció natural és la força motriu dels canvis que donen lloc a noves adaptacions (selecció positiva o adaptativa) i és també responsable del manteniment de les adaptacions ja existents (selecció negativa o purificadora). Destriar els canvis adaptatius dels no adaptatius ha estat un objectiu important dels estudis evolutius. L’anàlisi de la variabilitat nucleotídica en les poblacions actuals pot contribuir a identificar gens o regions del genoma en les quals s’hagin produït canvis adaptatius en la seva història més recent. L’increment de freqüència d’una mutació avantatjosa afecta el nivell i el patró de la variabilitat en les zones adjacents a la diana de la selecció. L’empremta produïda per l’acció recent de la selecció natural permet inferir-ne l’acció. Tanmateix, la detecció que en una regió del genoma s’ha produït recentment un canvi adaptatiu constitueix l’inici d’una cursa de llarg recorregut per entendre l’adaptació en el nivell molecular. Paraules clau: variabilitat nucleotídica, adaptació, selecció positiva, arrossegament selectiu, rastreig genòmic. NUCLEOTIDE POLYMORPHISM AND RECENT ADAPTIVE EVENTS SUMMARY Individuals of any species exhibit some characteristics that render them especially adapted to their biotic and abiotic environment. Natural selection is the driving force of new adaptations (positive or adaptive selection), and it is also responsible for the maintenance of existing adaptations (negative or purifying selection). Disentangling adaptive from non-adaptive changes constitutes an important and long standing question in evo-
94 M. Aguadé
lutionary biology. The analysis of nucleotide variation in extant populations can contribute to the identification of genes and genomic regions that have suffered adaptive changes in their most recent evolutionary history. The fixation of an advantageous mutation affects the level and pattern of variation at sites closely linked to the target of selection. The recent action of natural selection can thus be inferred through the footprint left on linked nucleotide variation. Detecting target genes of recent positive selection constitutes the first, though very important, step toward understanding adaptation at the molecular level. Key words: nucleotide variation, adaptation, positive selection, selective sweep, genome scan. L’evolució biològica comporta canvis en les característiques dels organismes al llarg del temps i fa, per tant, referència a canvis heretables. Alguns canvis evolutius constitueixen una resposta envers el repte que poden suposar per a la supervivència dels individus d’una espècie els canvis en el seu ambient biòtic i abiòtic com, per exemple, l’adquisició de tolerància a altes concentracions d’un contaminant. Aquests canvis impliquen una millor adaptació al nou ambient i s’anomenen canvis adaptatius. Com ja va proposar Darwin el 1859, la selecció natural és la força motriu dels canvis que donen lloc a noves adaptacions (selecció positiva o adaptativa), i és també responsable del manteniment de les adaptacions ja existents (selecció negativa o purificadora). Tanmateix, no tots els canvis evolutius són adaptatius i, per tant, altres factors com la deriva genètica (canvi aleatori de les freqüències gèniques) en poden ser els responsables. Cal remarcar que perquè hi hagi selecció natural no solament ha d’existir variabilitat genètica subjacent a la variabilitat fenotípica, sinó que els individus que presenten els diversos fenotips han de diferir en la capacitat de sobreviure i reproduir-se, és a dir, en la seva eficàcia biològica. Destriar els canvis adaptatius dels no adaptatius ha estat un objectiu important en els estudis evolutius, i s’ha abordat a diversos nivells, que van des de l’organísmic fins al molecular. Tanmateix, aquesta tasca
no és fàcil perquè sovint es desconeixen les relacions entre fenotip, genotip i eficàcia biològica. A continuació, es presentarà com l’anàlisi de la variabilitat nucleotídica en les poblacions actuals pot contribuir a identificar gens o regions del genoma en les quals s’hagin produït canvis adaptatius en la seva història més recent. VARIABILITAT NUCLEOTÍDICA, SELECCIÓ NATURAL I DERIVA GENÈTICA En comparar seqüències de gens específics —o de genomes complets— procedents d’individus, ja siguin de la mateixa espècie o d’espècies diferents, es detecten diferències nucleotídiques (vegeu la figura 1). Aquestes diferències constitueixen un subconjunt molt reduït de totes les mutacions que s’han donat en la història evolutiva del llinatge corresponent: són aquelles que han perdurat des que s’originaren per mutació. Algunes d’aquestes mutacions hauran assolit una freqüència del 100 % i es trobaran, per tant, en tots els individus de l’espècie (canvis fixats) contribuint a la divergència o variabilitat interespecífica. En canvi, les altres mutacions que han perdurat hauran assolit freqüències inferiors al 100 %, establiran les diferències entre individus de la mateixa espècie i contribuiran al polimorfisme o variabilitat intraespecífica.
Polimorfisme nucleotídic i canvis adaptatius recents 95
El nivell i el patró de la variació que perdura al llarg del temps és el resultat de la història evolutiva de la població o espècie, història que inclou tant els esdeveniments estocàstics associats al procés evolutiu (deriva genètica) com els possibles esdeveniments selectius i els canvis demogràfics. La variabilitat nucleotídica observada en les seqüències actuals conté, per tant, informació sobre el passat evolutiu de la població estudiada o espècies comparades. Per aquest motiu, la comparació de seqüències de DNA a escala intraespecífica i interespecífica pot informar-nos sobre el paper que han tingut les diferents forces evolutives en l’evolució de les regions estudiades i, alhora, pot contribuir a la identificació de canvis nucleotídics adaptatius. L’aproximació clàssica per detectar l’acció de la selecció natural mitjançant la comparació de seqüències de DNA es fonamenta en models teòrics de genètica de poblacions (Hartl i Clark, 2007). Aquests models permeten fer prediccions sobre el nivell i el patró de variació esperat en absència i en presència de selecció positiva. Les prediccions en absència de selecció positiva es ba-
Figura 1. Representació esquemàtica de la variabilitat nucleotídica en una regió alfa del genoma en les espècies a i b. Cada línia correspon a la seqüència d’un individu diferent i cada columna a una posició nucleotídica variable en el conjunt de les dues espècies. La variant ancestral en cada posició es representa en groc i les variants derivades en diferents colors: blau clar, variants polimòrfiques en l’espècie a; blau fosc, variants fixades en l’espècie a; verd clar, variants polimòrfiques en l’espècie b; verd fosc, variants fixades en l’espècie b.
sen en la teoria neutralista de l’evolució molecular proposada per Kimura a finals dels anys seixanta (Kimura 1980, 1983; Aguadé, 2001) i en el desenvolupament posterior de la teoria de la coalescència (Hudson, 1990; Aguadé et al., 2004). Les prediccions en presència de selecció incorporen el model de selecció direccional positiva (Hartl i Clark, 2007) i a escala intraespecífica es basen en el model desenvolupat per Maynard-Smith i Haigh (1974). Aquest model estudia l’efecte de la fixació d’una mutació selectivament avantatjosa sobre la variabilitat neutra a les posicions adjacents a la diana de la selecció (efecte d’autoestopista). HIPÒTESI NEUTRALISTA DE L’EVOLUCIÓ MOLECULAR Segons la teoria neutralista de l’evolució molecular, la majoria de les mutacions que segreguen les poblacions i es fixen al llarg de l’evolució són selectivament neutres, és a dir, no afecten l’eficàcia biològica. Conseqüentment, el seu destí, ja sigui la pèrdua o la fixació, està regit per l’atzar (deriva genètica). És fàcil visualitzar aquest efecte estocàstic com l’efecte de mostrejar un nombre finit de gàmetes en cada generació, que, per a organismes diploides, serà igual a 2N, amb N com a nombre d’individus. Quan la grandària de la població roman constant al llarg de les generacions (N1 = N2 = N3 = … = Ni) s’estableix un equilibri entre l’aportació de variació a la població per mutació i la seva pèrdua per deriva genètica (equilibri deriva-mutació), i el polimorfisme i la divergència són dues vessants del mateix procés. A més, en absència de selecció positiva i en l’equilibri deriva-mutació els nivells de polimorfisme i de divergència estaran correlacionats perquè ambdós depenen de la taxa d’aparició de les mutacions neutres. Cal recordar que les mutacions selectivament
96 M. Aguadé
deletèries són eliminades per acció de la selecció direccional negativa o purificadora, per la qual cosa no contribueixen als canvis fixats i generalment tampoc als canvis polimòrfics. Les posicions nucleotídiques, gens o regions genòmiques que presenten un major percentatge de mutacions deletèries presentaran una menor taxa de mutació neutra i, per tant, evolucionaran més lentament i proporcionalment presentaran menys polimorfisme (Kimura, 1980; Hartl i Clark, 2007). D’aquesta manera, si per l’acció diferencial de la selecció purificadora el nivell de divergència en una regió alfa fos tres vegades inferior al d’una regió beta,
Figura 2. Representació esquemàtica de l’efecte sobre la variabilitat nucleotídica de la fixació d’una mutació avantatjosa —arrossegament selectiu complet— en absència i en presència de recombinació. Cada línia correspon a una seqüència. La variabilitat resultant de mutacions neutres sorgides abans i després de l’esdeveniment selectiu es representa en blau clar i blau fosc, respectivament. La mutació avantatjosa que arriba a la fixació es representa en vermell. Els esdeveniments recombinatoris es representen com creus.
s’esperaria que el nivell de polimorfisme a la primera regió també fos tres vegades inferior que a la segona. EFECTE DELS CANVIS ADAPTATIUS RECENTS SOBRE LA VARIABILITAT NEUTRA En poblacions finites, part de les mutacions que confereixen un avantatge selectiu als seus portadors, és a dir, que incrementen la seva eficàcia biològica, es perden per atzar, de manera que no contribueixen al canvi evolutiu. Són les mutacions avantatjoses les que arriben a fixar-se en la població, i aquelles que es mantenen amb freqüències apreciables les que donen lloc a noves adaptacions i, alhora, afecten els nivells i els patrons de la variació neutra. Per facilitar la comprensió de l’efecte d’autoestopista proposat per Maynard-Smith i Haigh (1974), es considerarà inicialment un escenari de selecció direccional positiva en què: a) la població en la qual es dóna la mutació avantatjosa que arribarà a la fixació és una població en què s’ha assolit l’equilibri deriva-mutació per a la variació nucleotídica neutra, i b) la mutació s’origina en una regió del genoma que no recombina com, per exemple, el DNA mitocondrial. La mutació avantatjosa incrementarà ràpidament de freqüència fins a assolir la fixació (vegeu la figura 2). Donada l’absència de recombinació, tota la molècula s’hereta com una unitat, per la qual cosa no únicament es fixarà la variant nucleotídica que confereix l’avantatge selectiu, sinó que ho farà l’haplotip o seqüència concreta en la qual s’originà la mutació (vegeu la figura 2). Això implica que juntament amb la mutació avantatjosa també es fixen totes aquelles variants neutres que es troben al mateix haplotip. Maynard-Smith i Haig anomenaren efecte d’autoestopista l’efecte que té una mu-
Polimorfisme nucleotídic i canvis adaptatius recents 97
tació avantatjosa sobre la variabilitat neutra en zones adjacents, de la mateixa manera que el destí del viatge d’un autoestopista —variabilitat neutra— està condicionat pel conductor del vehicle —mutació avantatjosa. Aquest efecte s’anomena també arrossegament selectiu i escombrada selectiva. L’efecte d’autoestopista és específic de locus, de manera que en la situació anterior de no-recombinació aquest efecte s’estén a tota la molècula, però no afecta la resta de molècules (cromosomes) que constitueixen el genoma. En zones del genoma amb recombinació (vegeu la figura 2), la regió afectada no serà tota la molècula en què es troba la diana de la selecció, sinó una regió al seu voltant. En ser l’arrossegament el resultat de l’associació entre la mutació avantatjosa i les variants presents a l’haplotip en què es donà, es pot entendre que l’associació es trenqui per recombinació més fàcilment en el cas de les variants més allunyades. Si considerem taxes de recombinació diferents i una mateixa distància envers la diana de la selecció, serà més probable que l’associació s’hagi trencat com més elevada sigui la taxa de recombinació. Altrament, la longitud de la regió afectada també
serà major com més gran sigui l’avantatge selectiu de la mutació favorable, ja que el temps de fixació i, per tant, també la probabilitat d’esdeveniments recombinatoris en aquesta fase, disminueix en augmentar l’avantatge selectiu. L’efecte de l’escombrada selectiva sobre el nivell i el patró de la variació neutra en les zones adjacents a la diana de la selecció és transitori. La variabilitat neutra a la regió afectada es recuperarà per mutació i amb el temps es tornarà a assolir el mateix nivell i patró de variació que hi havia abans de l’esdeveniment selectiu, és a dir, es tornarà a assolir l’equilibri deriva-mutació. Per tant, hi haurà un període relativament curt en el qual l’empremta deixada sobre la variabilitat neutra serà detectable. Això comporta que els estudis basats en dades de polimorfisme o variabilitat intraespecífica permetin detectar únicament esdeveniments selectius recents. Tant en espècies com Drosophila melanogaster, que tenen un temps de generació curt i una elevada grandària poblacional, com en espècies amb un major temps de generació però una menor grandària poblacional, com l’espècie humana, s’estaria parlant d’esdeveniments selec-
T T T TG T T AAGAAT C AAG T T AT CGGGGCG T C C C AGG - C C TGG T - G - C AT T T - - - C T C CG - T - GAGGGGGG T . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . C . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . TCCGC . . T . . . CCCA . . . AAC T . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . TCCGG . . TC TGC . C . . . . A . C T . . C . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . TCCGC . T T . . . CCCA . . TA . C . . C . . . . . . . . G . . . . . . . . . . . . . . . . . . . . . . . d G . . AAAA . T . T . A . AGA . . AAA . . . . . TCCGG . . TC TGC . C . . . . A . C . . . . . . . . . . . G . . . . . . T . . . ACA i . d . . . . TCCGC . . T . T . C . . . . . . AAC T . . . . TA . . . . G . ATA . d . d . . GCA i . d . . . . . . AG . . . . . . G . C . . . . . . . . . . . TG . T . . . . AG . A . AAA . . G . . TCCGCA . T . . . C . . . . . . AAC T . . . T . . . A . d T . T . A . AGA . . AAA . . . . . TCCGG . . TC TGC . C . . . . A . C . . . . . . . . . . . G . . . . . . T . . . ACA i . d . . . . TCCGCA . T . . . C . . . . . . AAC T . . . T . . . A . d . C . . . . . . . . . . . TG . T . . . . AG . A . AAA . . . . . . . AG . . . AAA . . . . C T C CGC . . T . . . C C C AG . . . . C . T . . . . . . . A . G . AT A . . . . . GGC A i . d . . . . . . AG . . . AAA . . . . C T C CGC . . T . . . C C C AG . . . . C . T . . . . . . . A . G . AT A . . . . . GGC A i . d . . . . TCCGCA . T . . . C . . . . . . AAC T . . . T . . . A . d . C . . . . . . . . . . . TG . T . . . . AG . A . AAA . . . . . T C CGC . . T . . . C C C AGC . AAC T . . C . . . T . . . G T . . . . . . . T . GC A i i . . G . . . d d G . . . AAA . A . . . TCCGC . T T . . . CCCA . . TA . C . . C . . . . . . . . G . . . . . . . . . . . . . . . . . . . . . . . d G . . AAAA .
Figura 3. Estructuració haplotípica resultant de la presència d’un haplotip amb molt poca variabilitat i de freqüència intermèdia en la població estudiada (modificat a partir de Rozas et al., 2001). Cada línia correspon a la seqüència d’un individu diferent i cada columna a una posició nucleotídica variable. Un punt indica el mateix nucleòtid que a la primera seqüència; d_, deleció de diversos nucleòtids. El rectangle blanc a la dreta indica l’haplotip amb poca variació i el rectangle ratllat indica un conjunt d’haplotips amb un nivell normal de variabilitat.
98 M. Aguadé
tius ocorreguts en les darreres desenes de milers d’anys. Les mutacions avantatjoses que assoleixen la fixació deixen una empremta diferent de la que deixen aquelles que no han arribat a fixar-se —escombrada selectiva completa i escombrada selectiva parcial, respectivament. Altrament, l’efecte sobre el nivell i el patró de variació pot tenir diverses manifestacions en funció del temps transcorregut des de l’esdeveniment selectiu. Entre els efectes de les escombrades selectives completes es poden destacar la reducció del nivell de polimorfisme, l’excés de variants a baixa freqüència en la zona més propera a la diana de la selecció i l’amortiment d’aquestes manifestacions en allunyar-s’hi. En el cas de les escombrades selectives parcials aquestes alteracions afecten únicament el subconjunt (haplotip o classe al·lèlica derivada) amb la mutació avantatjosa. En aquest cas, és especialment destacable la presència d’un haplotip amb baixa variabilitat (l’haplotip derivat), malgrat la seva freqüència relativament elevada en la població (vegeu la figura 3) i la forta estructuració haplotípica que en resulta. Aquesta estructuració decau en augmentar la distància a la diana de la selecció (vegeu la figura 4), de mane-
ra similar a com decau l’empremta de les escombrades completes. APROXIMACIONS PER DETECTAR ESDEVENIMENTS SELECTIUS RECENTS EN L’ERA POSTGENÒMICA L’aproximació clàssica per detectar canvis adaptatius ha intentat maximitzar les possibilitats de detecció en concentrar l’estudi en un gen o conjunt de gens per la seva implicació en caràcters adaptatius. Els gens implicats en processos biològics com la resposta immunitària, la reproducció, la quimiorecepció i la tolerància a factors abiòtics han estat considerats gens candidats perquè la seva variació hagi estat modelada per la selecció natural positiva o adaptativa. La disponibilitat de la seqüència del genoma complet d’una espècie i el desenvolupament en l’era postgenòmica de tècniques d’alt rendiment per a la seqüenciació de DNA han facilitat l’aproximació de gens candidats i han permès una nova aproximació per detectar l’empremta de canvis adaptatius recents en les seqüències de
Figura 4. Representació esquemàtica de com la forta estructuració haplotípica decau amb la distància a la possible diana de la selecció en un arrossegament selectiu parcial. Arbres filogenètics amb múltiples seqüències d’una espècie (branques curtes) i una única seqüència d’una espècie propera (branca llarga a la part inferior de cada arbre) per a diversos fragments al llarg de la regió estudiada (modificat a partir de Quesada et al., 2003). El nombre de seqüències idèntiques o quasi idèntiques (quadrats petits) i la forta estructuració haplotípica resultant decau des dels fragments centrals cap als situats als extrems de la regió estudiada.
Polimorfisme nucleotídic i canvis adaptatius recents 99
DNA. L’aproximació de gens candidats per identificar possibles dianes de la selecció continua vigent i, a vegades, s’utilitza també per validar els mètodes emprats per detectar esdeveniments selectius recents i per desenvolupar-ne de nous. En l’era postgenòmica, aquesta aproximació s’ha pogut estendre, d’una banda, a múltiples gens implicats en un mateix caràcter possiblement adaptatiu i, de l’altra, més enllà de les espècies model clàssiques. En qualsevol cas, aquesta aproximació té limitacions perquè es fonamenta en el coneixement previ de la funció dels gens i en el fet que la característica estudiada hagi estat adaptativa en el passat recent o llunyà de l’espècie. L’estudi de la persistència de la lactasa en l’home constitueix un exemple de l’aproximació de gens candidats. Aquest tret fa referència a la persistència de l’enzim que hidrolitza la lactosa, el sucre de la llet dels mamífers, més enllà de l’època de lactància. Aquesta característica presenta una elevada freqüència en poblacions africanes de ramaders i en la població escandinava. Aquesta elevada freqüència i la capacitat que confereix aquest tret per utilitzar una nova font d’energia en societats ramaderes fan que el gen que codifica la lactasa sigui un gen candidat d’haver patit un canvi adaptatiu recent com a resposta a la disponibilitat del nou recurs alimentari. Estudis d’aquest gen en la població finesa han permès identificar una possible diana de la selecció en aquesta població i la nova variant ha estat sotmesa a estudis funcionals. A més, en aquesta població l’estudi de la variabilitat nucleotídica ha posat de manifest la baixa variabilitat de l’al·lel amb la novetat funcional i la conseqüent estructuració haplotípica, patró coincident amb l’esperat en el cas d’una escombrada selectiva parcial. En les diverses poblacions ramaderes estudiades a l’Àfrica s’ha trobat un patró similar de variació en aquest gen, si bé les possibles dianes de la
selecció difereixen entre poblacions. Aquesta observació és compatible amb esdeveniments selectius independents en cadascuna d’aquestes poblacions. Altrament, l’edat inferida per a aquests esdeveniments selectius en les poblacions africanes donaria suport al caràcter adaptatiu del tret en societats en les quals la domesticació de bestiar i l’inici de la ramaderia hagués afegit la llet animal com a possible recurs alimentari de l’espècie humana (Tishkoff et al., 2008). Els avenços associats als projectes genòmics han fet possible una aproximació alternativa a la de gens candidats. En contraposició a l’aproximació clássica, que va del gen candidat a l’anàlisi de la seva variabilitat per detectar l’empremta del possible esdeveniment selectiu, la nova aproximació s’inicia amb la detecció de l’empremta d’un possible esdeveniment selectiu en la variabilitat nucleotídica d’una regió i continua envers la identificació del gen candidat. Aquesta aproximació, que estudia la variabilitat nucleotídica en un nombre elevat i no esbiaixat de regions del genoma o fins i tot en tot el genoma (genome scan o rastreig genòmic), té el potencial d’identificar dianes de canvis adaptatius que resultaven imprevisibles. RASTREIG GENÒMIC, CANVIS DEMOGRÀFICS I SELECCIÓ POSITIVA Els estudis de polimorfisme a escala genòmica permeten quantificar el nivell de variació al llarg dels diferents cromosomes (vegeu la figura 5) i obtenir mesures informatives sobre la freqüència de les variants als llocs polimòrfics i sobre l’associació entre aquestes. L’interès rau a detectar regions la variabilitat de les quals presenti una desviació que no es pugui explicar en absència de selecció positiva. En poblacions de
100 M. Aguadé
grandària constant, s’utilitza el model neutre estàndard per detectar aquestes desviacions. La detecció de l’empremta deixada pels canvis nucleotídics adaptatius es veu dificultada en aquelles poblacions allunyades de l’equilibri deriva-mutació com a conseqüència de canvis demogràfics en la seva història recent. Aquesta dificultat sorgeix perquè l’efecte dels canvis demogràfics sobre el nivell i el patró de variació pot ser similar a l’efecte dels esdeveniments selectius. Així, una davallada important de la grandària poblacional pot produir una empremta similar a la d’una escombrada selectiva completa, és a dir, davallada en el nivell de variació i excés de variants a baixa freqüència. Ignorar la història demogràfica pot conduir, per tant, a inferències errònies sobre l’acció de la selecció positiva. Els estudis multilocus i de rastreig genòmic fan
possible diferenciar-ne els efectes, ja que els canvis demogràfics, a diferència dels canvis selectius, tenen un efecte sobre totes les regions del genoma. En algunes espècies i poblacions, els estudis de polimorfisme a escala genòmica han permès desenvolupar un model senzill per explicar la seva història demogràfica recent. En el cas de poblacions europees de D. melanogaster, per exemple, s’ha pogut ajustar un model senzill de coll d’ampolla de la variabilitat detectada en regions no codificadores (Stephan i Li, 2006), model que és, a més, consistent amb dades biogeogràfiques sobre la recent expansió d’aquesta espècie des de l’Àfrica. En altres espècies, com per exemple Arabidopsis thaliana, no ha estat possible trobar un model demogràfic senzill que sigui consistent amb les dades de polimorfisme, molt possiblement a causa de la major complexitat de la història demogràfica d’aquesta espècie (Schmid et al., 2005; Nordborg et al., 2005). La disponibilitat d’un model demogràfic permet utilitzar-lo per obtenir prediccions sobre el nivell i el patró de variació en absència de selecció i, per tant, per detectar regions la variabilitat de les quals no pugui ser explicada únicament mitjançant la història demogràfica de la població. Aquestes regions esdevenen regions candidates per a posteriors estudis, que poden conduir a la identificació de la possible diana de la selecció positiva i a la seva validació des del punt de vista funcional. CONSIDERACIONS FINALS
Figura 5. Variació en el nivell de polimorfisme nucleotídic al llarg d’una regió genòmica amb recombinació en la qual la variació reflecteix l’efecte de l’atzar (a) i en una regió amb una davallada local del nivell de polimorfisme que no pot ser explicada per aquest efecte (b).
En aquesta visió simplificada de com la comparació de seqüències permet fer inferències basades en models sobre l’acció de la selecció positiva, s’ha destacat la transitorietat de la distorsió generada en el nivell i el patró de la variació neutra en zones adja-
Polimorfisme nucleotídic i canvis adaptatius recents 101
cents a la diana de la selecció. S’ha destacat també que l’extensió de la zona afectada depèn de la magnitud de la taxa de recombinació i de l’avantatge selectiu de la mutació que ha incrementat de freqüència. Aquestes característiques fan que en incrementar el temps transcorregut des de la fixació —o l’increment de freqüència— de la mutació avantatjosa i, en disminuir el seu avantatge selectiu, l’empremta esdevingui menys discernible. D’aquesta manera, aquesta aproximació és òptima per detectar la fixació (o increment de freqüència) relativament recent de mutacions amb un fort avantatge selectiu. Cal afegir que les prediccions presentades es basen en un model selectiu en el qual la mutació avantatjosa és de nou origen, és a dir, que és present en un únic gàmeta dels 2N que passen a la generació següent. Recentment, s’han desenvolupat models en els quals la freqüència inicial de la mutació avantatjosa és superior perquè és tractada com una mutació ja present a la població que, com a conseqüència d’un canvi ambiental, ha passat de ser neutra a ser avantatjosa. L’empremta produïda per la fixació —o l’increment de freqüència— d’una d’aquestes mutacions (soft sweep o escombrada suau) és molt més feble i, per tant, més difícil de detectar que la produïda per una mutació de nou origen (hard sweep o escombrada forta). La detecció del fet que recentment s’hagi produït un canvi adaptatiu en una regió del genoma constitueix l’inici del camí per entendre l’adaptació en el nivell molecular. Aquest camí té un llarg recorregut i condueix a un objectiu més ambiciós, que és comprendre l’adaptació en el nivell de l’organisme. En identificar un gen com a diana de la selecció, sovint se’n desconeix la funció, la qual cosa dificulta entendre el perquè del canvi adaptatiu. En aquest sentit esdevenen, doncs, necessaris, estudis funcionals de les diverses variants (ancestrals i
derivades), així com de la seva possible relació amb diferents fenotips. La cursa per comprendre el procés adaptatiu és una cursa llarga i plena d’etapes difícils que requereix una aproximació des de múltiples vessants. BIBLIOGRAFIA Aguadé, M. (2001). «Evolució molecular. El rellotge de la vida». Mètode, 28: 33-35. Aguadé, M.; Rozas, J.; Segarra, C. (2004). «Inferring the action of natural selection from DNA sequence comparisons: data from Drosophila». A: Moya, A.; Font, E. [ed.]. Evolution: from molecules to ecosystems. Oxford: Oxford University Press: 11-19. Darwin, C. (1998). L’origen de les espècies. Barcelona: Edicions 62. Hartl, D. L.; Clark, A. G. (2007). Principles of population genetics. 3a ed. Sunderland: Sinauer Ass. Hudson, R. R. (1990). «Gene genealogies and the coalescent process». Oxf. Surv. Evol. Biol., 7: 1-44. Kimura, M. (1980). «Teoría neutralista de la evolución molecular». Investigación y Ciencia, 40: 46-55. — (1983). The neutral theory of molecular evolution. Cambridge: Cambridge University Press. Maynard-Smith, J.; Haigh, J. (1974). «The hitch-hiking effect of a favourable gene». Genet. Res., 23: 23-35. Nordborg, M.; Hu, T. T.; Ishino, Y.; Jhaveri, J.; Toomajian, C.; Zheng, H.; Bakker, E.; Calabrese, P.; Gladstone, J.; Goyal, R.; Jakobsson, M.; Kim, S.; Morozov, Y.; Padhukasahasram, B.; Plagnol, V.; Rosenberg, N. A.; Shah, C.; Wall, J. D.; Wang, J.; Zhao, K.; Kalbfleisch, T.; Schulz, V.; Kreitman, M.; Bergelson, J. (2005). «The pattern of polymorphism in Arabidopsis thaliana». PLoS Biol., 3: e196. Quesada, H.; Ramírez, U. E.; Rozas, J.; Aguadé, M. (2003). «Large-scale adaptive hitchhiking upon high recombination in Drosophila simulans». Genetics, 165: 895-900. Rozas, J.; Gullaud, M.; Blandin, G.; Aguadé, M. (2001). «DNA variation at the rp49 gene region of Drosophila simulans: Evolutionary inferences from an unusual haplotype structure». Genetics, 158: 1147-1155. Schmid, K. J.; Ramos-Onsins, S.; Ringys-Beckstein. H.; Weisshaar, B., Mitchell-Olds, T. (2005). «A multilocus sequence survey in Arabidopsis thaliana reveals a genome-wide departure from a neutral model of DNA sequence polymorphism». Genetics, 169: 1601-1615.
102 M. Aguadé
Stephan, W.; Li, H. (2007). «The recent demographic and adaptive history of Drosophila melanogaster». Heredity, 98: 65-68. Tishkoff, S. A.; Reed, F. A.; Ranciaro, A.; Voight, B. F.; Babbitt, C. C.; Silverman, J. S.; Powell, K.; Mortensen, H. M.; Hirbo, J. B.; Osman, M.; Ib-
rahim, M.; Omar, S. A.; Lema, G.; Nyambo, T. B.; Ghori, J.; Bumpstead, S.; Pritchard, J. K.; Wray, G. A.; Deloukas, P. (2007). «Convergent adaptation of human lactase persistence in Africa and Europe». Nat. Genet., 39: 31-40.
DOI: 10.2436/20.1501.02.80
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 103-121
COM GENS TAN SEMBLANTS GENEREN MORFOLOGIES TAN DIVERSES? EL PAPER CLAU DE LA GENÈTICA DEL DESENVOLUPAMENT I LA GENÒMICA COMPARADA EN LA VISIÓ DARWINIANA DE L’EVOLUCIÓ Jaume Baguñà Departament de Genètica, Universitat de Barcelona. Adreça per a la correspondència: Jaume Baguñà. Departament de Genètica, Universitat de Barcelona. Diagonal, 645. 08028 Barcelona. Adreça electrònica: jbaguna@ub.edu. RESUM D’ençà que Darwin (i Wallace) van formular la teoria de l’evolució per selecció natural, les relacions entre el desenvolupament embrionari i l’evolució morfològica han estat, llevat d’un breu període inicial, de mútua i absoluta ignorància. D’ençà de la dècada dels setanta, la biologia molecular i, molt especialment, la genètica del desenvolupament, la genòmica comparada i l’evo-devo (evolució i desenvolupament) han capgirat completament el panorama. Els gens controlen el desenvolupament i els canvis a escala genètica són el motor de la variació morfològica. D’altra banda, i contràriament al pensament evolutiu canònic, el nombre i tipus de gens són molt semblants en tots els animals, solen ser funcionalment equivalents i s’expressen en llocs i temps molt diversos al llarg del desenvolupament. Si gens i proteïnes estan conservats, la variació ha de venir necessàriament dels canvis en les seqüències cisreguladores que controlen on i quan s’expressen els gens. L’estudi d’aquestes regions de control i la seva integració i evolució en xarxes complexes de regulació gènica és el nou paradigma per a una teoria genètica de l’evolució morfològica. Aquesta nova visió és més propera al concepte bàsic de unitat de tipus amb modificacions de Darwin, que als postulats bàsics de la síntesi moderna neodarwiniana. Paraules clau: evolució, genètica del desenvolupament, evo-devo, cisregulació, xarxes gèniques.
104 J. Baguñà
HOW CAN SO SIMILAR GENES PRODUCE SUCH DIFFERENT MORPHOLOGIES? THE KEY ROLE OF DEVELOPMENTAL GENETICS AND COMPARATIVE GENOMICS IN THE DARWINIAN VIEW OF EVOLUTION SUMMARY Since Darwin (and Wallace) put forward the theory of evolution by natural selection, embryonic development and morphological evolution experienced, except for an early sunny spell, an absolute disregard to each other. Since the 1970s, Molecular Biology, and namely Developmental Genetics, Comparative Genomics and, later on, Evo-Devo, have changed for ever this odd situation. Embryonic development is controlled by genes and genetic changes are the base of morphological evolution. Moreover, at variance to cannonical evolutionary thinking, genes are similar in class and number among animals, are functionally equivalent, and are expressed at multiple places and times along development. The conservation of genes and proteins requires that morphological variation stems from cis-regulatory changes controlling when and where genes are expressed. The analysis of these regulatory regions, how they interconnect forming complex gene regulatory networks, and how they evolve in time to account for morphological variation represent a new paradigm to set up a new genetic theory of morphological evolution. Interestingly, this new paradigm falls closer to Darwin’s ‘unity of type with modification’ than to some basic postulates of the neodarwinian Modern Synthesis. Key words: evolution, developmental genetics, evo-devo, cis-regulation, gene regulatory networks. LA TEORIA DE L’EVOLUCIÓ DE DARWIN I L’EMBRIOLOGIA Quatre idees bàsiques La teoria de l’evolució per selecció natural (Darwin i Wallace, 1858; Darwin, 1859) va introduir un mecanisme extremadament persuasiu i explicatiu de l’evolució morfològica i funcional (adaptació) de les espècies al seu entorn i de l’evolució en general. L’origen de les espècies (Darwin, 1859) es pot dividir en dues grans parts. En la primera, Darwin argumenta a favor de l’evolució dels éssers vius. Ho fa ajuntant dos grans conceptes: unitat de tipus, basat en semblances i homologies, com a prova d’un avantpassat
comú, i condicions d’existència, és a dir, modificacions, diferències, adaptacions a l’entorn. Per a Darwin totes les formes de vida a la Terra —arbres i flors, cucs i mosques, balenes i humans— vénen d’avantpassats comuns. Aquests avantpassats (ja extingits) serien morfològicament prou diferents dels seus descendents moderns. Com més propers en el temps estiguin l’avantpassat i els descendents, més semblants seran morfològicament (p. ex., humans i ximpanzés). Com més llunyans en el temps, més diferents seran (p. ex., humans i ratolins, o humans i qualsevol espècie de peixos). Això es reflecteix en la classificació jeràrquica dels éssers vius en espècies, gèneres, famílies, etc. (la classificació linneana), que conforma l’anomenat arbre de la vida.
Com gens tan semblants generen morfologies tan diverses? 105
En la segona part, la més important i innovadora del llibre, Darwin es preguntà com i per què al llarg del temps les espècies han divergit entre si fins a generar la diversitat biològica actual. Com és ben sabut, la seva proposta fou que la competència ecològica (l’anomenada lluita per l’existència) entre els individus de les poblacions fa que aquells que presenten algun avantatge tinguin més probabilitat de sobreviure i, per tant, de donar més descendents que la mitjana, descendents que heretaran aquest avantatge. En altres paraules, en poblacions en què hi ha variació (els individus difereixen entre si), si aquestes variacions s’hereten i aquests individus produeixen més descendència que la mitjana, hi ha selecció natural. La selecció natural, doncs, duu el canvi evolutiu en la direcció d’una millor adaptació a les condicions locals. En resum, la competència per la supervivència genera selecció natural i aquesta explica les adaptacions i, en conseqüència, el canvi evolutiu. Un concepte clau de la teoria darwiniana, font de no poques polèmiques passades i presents, és el gradualisme; és a dir, que el canvi evolutiu és lent i a petites passes (gradual). El gradualisme de Darwin deriva del seguit d’observacions tretes del seu viatge al Beagle, dels nombrosos exemples de selecció artificial, de les dificultats (L’origen de les espècies té un capítol sencer titulat «Difficulties on theory») per explicar l’aparició i evolució d’òrgans extremadament perfectes i complexos (el seu exemple fou l’ull), i d’un cert sentit comú. Setanta anys més tard, el gradualisme fou sancionat per la teoria sintètica, i ha estat sempre contraposat a la munió de teories de caire saltacionista, macromutacional, etc. des de Bateson (1894) fins a avui dia. Darwin mai no menystingué, però, la possibilitat de canvis qualitatius de gran abast com a font de variació. Coneixia variacions en el nom-
bre de segments i vèrtebres de determinats animals (canvis merístics), canvis relativament grans en la selecció artificial de gossos, i acceptà els exemples, ja coneguts en el seu temps, de canvis heterocrònics (progènesi i neotènia), i els qualificava de «gradualisme retrospectiu». Per a Darwin tots aquests canvis eren, però, rars (heterocronies), o canvis possibles no viables en la natura (les races de gossos o la majoria dels canvis merístics esmentats). D’altra banda, Darwin sabia i, contràriament al que sovint es diu, acceptava, que la taxa de canvi evolutiu no era constant, i que períodes de canvi ràpid s’alternaven amb altres de canvi més lent. LA CONNEXIÓ EMBRIOLOGIA-EVOLUCIÓ (1830-1890) Malgrat l’èxit immediat que tingué la teoria de Darwin entre la comunitat científica, és ben sabut que hi havia tres incògnites o «forats» que en dificultaven la comprensió. En primer lloc, d’on surt i com surt la variació dins d’una població. En segon lloc, com s’hereta aquesta variació. I finalment, com la variació altera (canvia) la morfologia. Avui dia sabem que les variacions darwinianes són bàsicament (encara que no únicament) mutacions en el material hereditari que donen lloc a canvis en la morfologia de l’embrió i l’adult sobre les quals la selecció natural actuarà i produirà adaptació i evolució (vegeu la figura 1). En temps de Darwin, res no se sabia del material hereditari i (fora del, malauradament desconegut, treball de Mendel de 1865) res no se sabia dels mecanismes de l’herència. L’únic que hi havia eren dades del desenvolupament embrionari (embriologia) i la percepció que la variació es produïa al llarg d’aquest procés i donava lloc a variacions en els adults
106 J. Baguñà
subjectes de selecció natural. A més, els avenços en anatomia comparada, emprats inicialment en formes adultes, s’havien estès a l’embriologia i havien donat lloc al naixement de l’embriologia comparada. Per a Darwin, el desenvolupament embrionari es convertí en la millor prova a favor dels canvis de forma en l’evolució. Així, les semblances (homologies) morfològiques eren prova d’un avantpassat comú, una guia per a una classificació més racional dels éssers vius i un mètode molt eficaç per inferir les relacions filogenètiques entre tàxons actuals i extingits. Un paràgraf de L’origen de les espècies ho reflecteix clarament: «Els embrions d’organismes diferents d’una mateixa classe són sovint extraordinàriament semblants: no hi ha millor exemple que el referit per Agassiz, el qual, en haver-se oblidat d’etiquetar els embrions d’alguns animals vertebrats, no fou
ja capaç de saber si eren de mamífer, au o rèptil». I en una carta al seu amic Asa Gray li diu: «Al meu entendre, l’embriologia és, de lluny, la millor prova a favor del canvi morfològic». Els dos exemples històrics més citats sobre el bon lligam entre embriologia i evolució són la correcta classificació dels ascidis com a urocordats o procordats, i no com a mol·luscs sense closca, i la dels cirrípedes (aglans de mar o peus de cabra) com a crustacis, i no com a mol·luscs, com havia fet Cuvier (Gilbert, 2003). En ambdós casos fou la comparació entre fases larvàries el que donà la clau. Aquests i molts altres exemples transformaren l’embriologia comparada en una embriologia evolutiva. Sota les seves premisses semblava possible establir les connexions entre diferents grups d’organismes basant-se en la cerca d’homologies (semblances), bé entre els organismes adults, bé,
H G1
D
Adults
Adult1
Zigots
Adults
R
G2
Adultn
E
D: Desenvolupament E: Evolució H: Herència R: Reproducció
Figura 1. Representació esquemàtica de les relacions entre desenvolupament (D), evolució (E), herència (H) i reproducció (R) en el pas d’una generació (G1) a la següent (G2) en una població d’individus d’una espècie. Les diferències entre genotips unides a les variacions produïdes al llarg del desenvolupament (genotípiques o no) donen lloc a les diferències fenotípiques dels embrions i adults subjectes a selecció (evolució, E). Han calgut més de cent cinquanta anys, des de von Baer, Darwin i Mendel, per arribar a tancar satisfactòriament aquest cercle clau de relacions en la biologia.
Com gens tan semblants generen morfologies tan diverses? 107
com en els dos exemples anteriors, entre els seus embrions o larves. D’aquí s’esperava arribar a una classificació racional dels éssers vius, a establir les principals etapes evolutives —tal com, explícitament, va fer Haeckel (1866), amb la seva peculiar llei biogenètica— o, fins i tot, a deduir els mecanismes de transformació evolutiva. LA DESCONNEXIÓ (1890-1950) El somni durà poc. Per al sistema darwinià, basat en el principi d’un origen monofilètic per a tot el regne animal, la determinació de semblances degudes al fet de compartir un avantpassat (homologies) era la clau per establir lligams entre els diferents grups, actuals i extingits. La determinació d’homologies es revelà, però, molt més complicada del que s’esperava (encara ho és avui dia) i derivà molt sovint en debats totalment estèrils. El problema bàsic era com arribar a saber si estructures semblants eren derivades d’un ancestre comú que ja les tenia o eren fruit de la convergència adaptativa. Un segon problema provenia del fet que la mera comparació entre els processos embrionaris de grups propers no donava pràcticament cap pista sobre els possibles mecanismes de transformació entre aquests. La raó d’aquest fracàs era el desconeixement total dels mecanismes de producció de les variacions i dels mecanismes hereditaris. El 1894, Bateson reblà el clau sobre el taüt de l’embriologia comparada amb dues frases: «els debats sobre les homologies en la morfologia embrionària no són més que baralles inútils i sofisticades» i «el mètode embriològic ha fracassat pel que fa a determinar els mecanismes de l’evolució». Alhora, demanà buscar fets d’una altra mena. Ja sense Darwin (1809-1882), l’embriologia evolutiva desaparegué a finals del segle xix.
Alhora, l’embriologia comparada restà restringida a uns pocs laboratoris, mentre que nasqué l’anomenada embriologia experimental, que dominarà la biologia del desenvolupament fins als anys seixanta del segle xx. L’embriologia experimental plantejà entendre els mecanismes del desenvolupament embrionari de manera operacional; és a dir, manipulant els embrions. En emprar diferents grups d’organismes, aquesta disciplina cercava més les diferències entre aquests que expliquessin les diferències de la morfologia embrionària i adulta que no les semblances, com pretenia l’embriologia evolutiva. EL RESULTAT: UNA EVOLUCIÓ AMB GENÈTICA PERÒ SENSE DESENVOLUPAMENT, I UN DESENVOLUPAMENT SENSE GENÈTICA I SENSE EVOLUCIÓ (1930-1970) El redescobriment de les lleis de Mendel el 1900 significà una nova davallada del darwinisme i certificà el divorci quasi total entre embriologia i evolució. D’una banda, almenys en una primera etapa, les variacions trobades (ara anomenades mutacions) eren grans, qualitatives, molt allunyades de les microvariacions, de caire quasi quantitatiu, que postulava el gradualisme darwinià. D’altra banda, l’embriologia experimental centrà els seus estudis en les etapes inicials del desenvolupament i, en concret, en el zigot i en com els «factors» citoplasmàtics presents en aquest es distribuïen diferencialment en l’espai i el temps per «controlar» la formació dels diferents teixits i òrgans. Amb l’honrosa excepció de T. Boveri, tots els embriòlegs consideraven el nucli cel·lular (on hi ha els cromosomes... i els gens) irrellevant i, en conseqüència, els gens també.
108 J. Baguñà
En les dues primeres dècades del segle xx, l’avenç imparable de la genètica mendeliana produí la unió definitiva entre genètica i evolució i el triomf inqüestionable de la teoria de l’evolució de Darwin per selecció natural. En primer lloc, la variació demostrà ser en la majoria de casos de tipus quantitatiu, continu, i els canvis generats, petits. En segon lloc, Wright, Fisher i Haldane, entre altres, fusionaren les idees de Darwin sobre selecció natural i les troballes de Mendel i altres sobre com els caràcters passen (s’hereten) de pares a fills en una descripció matemàtica de l’estructura genètica de les poblacions i de com canvia al llarg de les generacions. Era la denominada síntesi moderna dels anys trenta. Per als genètics de poblacions, la forma dels organismes, o fenotip, era una traducció directa de la seva informació hereditària o genotip. I el canvi al llarg de les generacions s’explicava pel canvi d’una variant al·lèlica d’un gen per una altra. La selecció natural actuava canviant la freqüència dels gens en la propera generació segons l’aptitud (fitness) dels fenotips en la generació precedent. Segons aquesta visió, el coneixement de la naturalesa dels gens i la seva expressió era innecessari; el que comptava eren els canvis en la freqüència dels gens en les poblacions que permetien explicar la importància de determinades variants al·lèliques de determinats gens o grups de gens per produir les exquisides adaptacions de cada espècie al seu entorn natural. En aquestes condicions, saber com es generen els caràcters (més o menys adaptatius) al llarg del desenvolupament tenia molt poc interès. I en honor a la veritat, els embriòlegs no sabien res de com els gens controlen el desenvolupament. El corol·lari d’aquesta història és l’absència de qualsevol referència al desenvolupament embrionari en l’anomenada síntesi moderna de l’evolució. Una reflexió final. Si el desenvolupa-
ment, separat de la genètica i de l’evolució, restà orfe, l’evolució sense el desenvolupament quedà coixa. La síntesi moderna presentava força llacunes. D’una banda, el desconeixement de la naturalesa dels gens i el seu mode d’acció era absolut. D’altra banda, el desconeixement de com els gens (genotip) controlaven la formació dels caràcters (fenotip) al llarg del desenvolupament els amagava una informació clau de com es genera la variació. Finalment, si bé la síntesi moderna era molt adequada per explicar l’evolució dins de les poblacions (adaptacions o microevolució), no tenia cap resposta per al que la gent pensa i es pregunta quan es parla d’evolució: l’origen i evolució dels grans fílums, l’aparició de nombroses novetats evolutives (esquelets, ales, cervell, ulls, plomes...) i, irònicament, el tema principal del llibre de Darwin: l’origen de les espècies. EL RETORN (I REVENJA) DEL DESENVOLUPAMENT: LA GENÈTICA DEL DESENVOLUPAMENT (1960-1990) El gir conceptual que permet unir genètica i desenvolupament prové de dos descobriments clau de la biologia del segle xx. El primer és la publicació del model de la doble hèlix del DNA per part de Watson i Crick (1953), que va focalitzar els processos genètics en l’estructura del DNA i va permetre de cop unir herència, reproducció, desenvolupament i evolució. El segon és el model de l’operó de Jacob i Monod (1961) que, per primer cop, demostra com la diferenciació bacteriana a curt termini és regulada mitjançant el control de l’expressió gènica. Els mateixos autors van fer extensiu aquest model de regulació al control de l’expressió gènica durant el desenvolupament
Com gens tan semblants generen morfologies tan diverses? 109
d’organismes pluricel·lulars (Monod i Jacob, 1961). La genètica del desenvolupament. Mutagènesi a gran escala en organismes model El gran salt qualitatiu que uneix definitivament la genètica i el desenvolupament en la genètica del desenvolupament es produeix en les dècades dels setanta i vuitanta, en introduir els anomenats organismes model i, molt especialment, la inducció i anàlisi de milers de mutacions que alteren el seu desenvolupament. La mosca del vinagre Drosophila melanogaster i el nematode Caenorhabditis elegans pel que fa als animals, i Arabidopsis thaliana pel que fa als vegetals, van subministrar una munió de mutants que permeteren identificar, mapar i analitzar els efectes en el desenvolupament de milers de gens, investigar les seves jerarquies i interaccions i demostrar el paper clau d’alguns d’aquests en establir els eixos axials corporals, els fulls germinals i els primordis dels principals òrgans i teixits. Amb aquestes eines, la dècada dels setanta inicià la primera edat d’or de la genètica del desenvolupament. Es determinaren els anomenats programes genètics de nombrosos processos del desenvolupament. S’entén per programa genètic el desplegament temporal i espacial de grups de gens per generar una morfologia concreta. Com a exemples importants cal esmentar els gens materns i zigòtics que controlen la determinació dels eixos corporals (anteroposterior i dorsoventral) i la formació de segments en Drosophila (Nüsslein-Volhard i Wieschaus, 1980), els gens que intervenen en el patró de desenvolupament de la vulva en C. elegans (Ferguson et al., 1987), i els gens que determinen el patró embrionari inicial en Arabidopsis (Jürgens et al., 1991). A
aquests primers exemples els segueix una allau de dades sobre els gens, blocs de gens i xarxes de gens implicats en la gènesi, entre molts altres, del mesoderma, el sistema nerviós, la musculatura, la cresta neural, la formació d’apèndixs i extremitats, etc. L’anàlisi comparada d’aquests programes mostra propietats invariants importants com la jerarquia, la combinatòria, la retroalimentació (feedback) positiva o negativa, els efectes de llindar d’activació o repressió i la repressió diferencial. L’acció conjunta d’aquestes propietats ha permès definir les anomenades xarxes reguladores de gens (gene regulatory networks o GRN; Davidson, 2006), que són el conjunt de gens (des de vint fins a cinccents) amb totes les seves interconnexions conegudes, que intervenen, per exemple, en la determinació del mesoderma i l’esquelet en l’eriçó de mar o la determinació dorsoventral d’estructures (mesoderma-sistema nerviós-epidermis-estructures extraembrionàries) en Drosophila. Un efecte intel·lectualment devastador de la genètica del desenvolupament i la genòmica comparada: la caixa d’eines (genetic toolkit) del desenvolupament és molt semblant en tots els organismes A mitjan dècada dels vuitanta s’inicia la segona edat d’or en genètica del desenvolupament que, a finals de la dècada dels noranta, culminà amb la unió entre la genètica del desenvolupament i l’evolució: l’evo-devo. El seu origen és la introducció de tècniques de biologia i genètica molecular, desenvolupades des dels inicis dels setanta, en l’estudi dels gens del desenvolupament detectats per mutagènesi. L’aïllament, seqüenciació i manipulació fan dels gens entitats fisicoquímiques que es poden identificar, analitzar, i caracteritzar i releguen el gen, com a ens abstracte (detectable solament
110 J. Baguñà
en encreuaments) a la genètica de la transmissió i a la genètica de poblacions. Alhora es desenvolupen mètodes per detectar el lloc i el temps d’expressió dels gens, tant en l’mRNA com en les proteïnes. Aplicades inicialment als organismes model, aquestes tècniques es mostren igualment eficaces en qualsevol organisme. El resultat és una allau de dades de les quals es desprèn un fet inesperat, sorprenent i de gran abast que mai ningú no havia predit: la majoria de gens del desenvolupament identificats i caracteritzats en Droso phila i C. elegans presenten gens homòlegs en els altres animals, des dels anèl·lids i mol· luscs fins als vertebrats. Les seves seqüències (la part codificant) són sovint similars i les seves expressions espacial i temporal també semblants, si no idèntiques. L’exemple més notable és l’agrupament de gens Hox, detectats primer en Drosophila i més tard en pràcticament tots els animals. Aquest grup de gens té un paper clau a l’hora de definir la posició al llarg de l’eix anteroposterior (AP) del cos, fet que implicava que la seva funció ancestral era ja aquesta i s’havia transmès d’avantpassats a descendents al llarg de gairebé sis-cents milions d’anys d’evolució. A més dels gens Hox, altres gens i grups de gens conservats es trobaren controlant altres eixos corporals i la formació d’apèndixs, òrgans i teixits diversos en grups d’organismes filogenèticament distants. La sorprenent conservació dels gens principals del desenvolupament (genetic toolkit, Carroll et al., 2005) al llarg de l’escala filètica suggerí d’immediat una conservació en el programa de desenvolupament. Aquesta conservació era anàloga a la unitat de tipus darwiniana per a la morfologia. Ara bé, l’evident diversitat morfològica entre tàxons demanava, malgrat aquesta gran conservació genètica, l’existència de variacions al llarg del temps, en els llocs d’expressió, de quantitat de producte i d’interaccions
amb altres gens, i entre els gens homòlegs de tàxons diversos. Altrament, no s’hauria produït evolució. Aquestes variacions produirien al llarg del desenvolupament diferències morfològiques i funcionals entre tàxons sobre les quals la selecció natural operaria adaptant els organismes a l’entorn i generant l’enorme biodiversitat passada i present. D’aquestes premisses surt l’argument bàsic de l’evolució i el desenvolupament, o evo-devo: si l’evolució és canvi en la morfologia, i si la morfologia surt del desenvolupament embrionari, ja que els gens i les xarxes de gens controlen el desenvolupament embrionari, entendre com els gens han evolucionat és la clau per entendre l’evolució morfològica (per a referències generals, vegeu Baguñà i García-Fernàndez, 2003). LA PARADOXA DE L’EVO-DEVO: COM GENS TAN SEMBLANTS DONEN LLOC A MORFOLOGIES TAN DIVERSES? De simple paradoxa a paradoxa múltiple El fet que el desenvolupament embrionari de mosques, cucs i humans fos controlat per gens molt semblants era contrari, en principi, al sentit comú embriològic. I era contrari també al pensament canònic de la síntesi moderna, basat essencialment en la variació en les regions codificants dels gens, molts dels quals es creia que serien nous o molt diferents entre espècies allunyades. Aquesta paradoxa augmentà més encara amb les dades de la genòmica comparada. En primer lloc, el nombre creixent de genomes sencers seqüenciats demostrà que era fals el postulat que el nombre de gens codificants seria proporcional a la complexitat
Com gens tan semblants generen morfologies tan diverses? 111 Taula 1. Nombre de gens i complexitat, deduïts de la seqüenciació total de genomes i del nombre de tipus cel·lulars diferenciats Espècie Unicel·lulars Escherichia coli Saccharomyces cerevisae Pluricel·lulars (animals) Trichoplax adhaerens Nematostella vectensis Caenorhabditis elegans Drosophila melanogaster Strongylocentrotus purpuratus Branchiostoma floridae Ciona sp. Mus musculus Homo sapiens Pluricel·lulars (plantes) Arabidopsis thaliana Oryzia sativa
Grup
Nombre de gens
Tipus cel·lulars
Bacteris Llevats
4.400 6.340
1 1
Placozous Cnidaris Nematodes Artròpodes Equinoderms Cefalocordats Urocordats Cordats Cordats
11.514 18.000 18.424 13.601 27.350 21.900 16.000 29.000 27.000
4-5 10-12 30 60 50 100-150 100-150 200-300 200-300
Angiospermes Angiospermes
25.500 50.000
30 30
Tret, parcialment, de Valentine, 2004.
(es mesuri com es mesuri) dels organismes; és a dir, pocs gens per a esponges, cnidaris i cucs, i cada cop més gens en anar entrant en els vertebrats, per culminar amb màxims en els mamífers i els humans. De nou, la sorpresa fou total. Com mostra la taula 1, tot i que els mamífers (humans inclosos) tenen 25.000-30.000 gens (en bona part procedents de dues duplicacions massives en l’origen dels vertebrats), la majoria d’organismes, incloent-hi els més «inferiors», tenen nombres relativament semblants de gens. Això indica que la creació de nous gens o les duplicacions de gens ja existents, no han estat tan freqüents com es creia. En segon lloc, estudis funcionals entre gens homòlegs pertanyents a fílums molt divergents (Drosophila vs. vertebrats; cnidaris vs. Drosophila, etc.) han demostrat que són funcionalment equivalents. Així, la proteïna del gen Pax-6 del ratolí, introduït per transgènesi en Drosophila, és capaç d’induir ommatidis (ulls) en aquesta mosca de mane-
ra semblant com ho fa el seu gen homòleg Eyeless (ey), i viceversa. Semblantment, el gen Achaete-Scute de cnidaris (CnASH), homòleg al corresponent de Drosophila, és capaç d’induir òrgans sensorials en Drosophila, com ho farien els seus homòlegs propis (Grens et al., 1995). Per a les seqüències codificants això indica un grau de conservació més elevat de l’esperat. Finalment, dades molt recents indiquen que fins i tot els invertebrats anomenats «inferiors», com cnidaris i esponges, tenen gens i famílies de gens que s’expressen en teixits i òrgans de vertebrats que aquests animals no tenen. Així, onze de les dotze famílies de gens Wnt dels vertebrats estan presents en cnidaris, en els quals s’expressen en llocs sovint difícilment homologables als dels vertebrats (Kuserow et al., 2005). A més, tot i no tenir estrictament mesoderma, els cnidaris tenen tots els gens mesodèrmics d’organismes més avançats amb mesoderma. Finalment, tot i que les esponges no tenen sistema
112 J. Baguñà Taula 2. Característiques bàsiques dels gens i els genomes animals segons la síntesi moderna i l’evo-devo Característica Nombre de gens Tipus de gens Funcionalitat Expressió (espai + temps) Pliotropia Font principal de variació en els gens
Síntesi moderna Molt diferent Diferents No equivalents Única/poques Relacional Zona codificant
nerviós, tenen tot el conjunt de gens que codifiquen les proteïnes dels complexos postsinàptics (Sakarya et al., 2007). Un darrer aspecte de la paradoxa vingué dels estudis d’expressió gènica de molts gens del desenvolupament. Segons la genètica clàssica i la genètica de poblacions, la majoria de gens tindrien una funció única, determinada, i actuarien en un lloc i temps precisos en el desenvolupament. Els estudis d’expressió dels gens (per hibridació in situ i per immunocitoquímica amb anticossos) mostraren un panorama prou diferent. Tant en Drosophila com en C. elegans, molts dels gens majors del desenvolupament s’expressaven en múltiples llocs i en temps diferents al llarg del desenvolupament. Aquesta sorprenent troballa s’estengué a altres organismes, de les esponges als humans, i això indicava que era una propietat general dels gens i dels sistemes en desenvolupament. Una proposta de solució. La pliotropia en mosaic i la gran modularitat de les regions cisreguladores dels gens del desenvolupament Si el nombre de gens és semblant, si el tipus de gens també, si la part codificant dels gens sembla força conservada i és funcionalment equivalent entre tàxons, i si cada gen del desenvolupament s’expressa en múltiples llocs en el temps i l’espai embri-
Evo-devo Similar Semblants Equivalents Múltiple Autònoma Zona reguladora
onaris, l’única solució a aquesta paradoxa múltiple (vegeu la taula 2) és que la majoria de la variació s’esdevé en les regions reguladores dels gens; és a dir, aquelles regions responsables de quan, on i amb quina intensitat s’activen els gens. Com moltes idees clau en biologia, aquesta té també certs precedents. El 1975 King i Wilson compararen seqüències de DNA i proteïnes entre humans i el ximpanzés. En comprovar que són massa semblants per explicar les evidents diferències morfològiques, van suggerir que on cal trobar l’explicació és en canvis menors en la regulació dels gens. Al poc, François Jacob (1977) publicà un treball que esdevingué clàssic, on postulava que més que actuar com un enginyer, creant si cal estructures i peces de nou, l’evolució ha actuat i actua com un adobador potiner (un bricoleur, en francès), aprofitant només el que té a mà. Segons Jacob, petits canvis que modifiquen la distribució en l’espai i el temps de les mateixes estructures són suficients per afectar profundament la forma, el funcionament, i la conducta del producte final: l’organisme adult. Aquestes idees lligaven amb un fenomen descrit amb anterioritat, l’abast del qual no va ser entès en el seu temps: la pliotropia en mosaic (Hadorn, 1961). S’entén per pliotropia el conjunt o síndrome d’efectes fenotípics provocats per la mutació en un gen. Els embriòlegs i els genètics clàssics coneixien l’anomenada pliotropia relacional o no autònoma, resultant de les nombroses in-
Com gens tan semblants generen morfologies tan diverses? 113
teraccions entre teixits i òrgans al llarg del desenvolupament. Si a causa de mutacions o de manipulacions experimentals una estructura o teixit del l’embrió no es forma o s’altera, la resta d’estructures que en depenen o hi interaccionen també queden alterades i es produeix una cascada de defectes, sovint fatal; d’aquí la síndrome pliotròpica (vegeu la figura 2a). Ronald A. Fisher, un dels pares de la síntesi moderna, assumia en el seu famós model geomètric que cada mutació afectava potencialment tots els caràcters (pliotropia universal, Fisher, 1930), un supòsit òbviament exagerat. En contraposició, la pliotropia en mosaic o autònoma, a
detectada pels primers genètics del desenvolupament, sorgí en observar que la majoria de gens i proteïnes que regulen el desenvolupament actuen independentment en diferents tipus cel·lulars, capes germinals, regions corporals i estadis del desenvolupament. En aquest cas, una mutació en un gen provoca també una síndrome pliotròpica, però molt menor, a causa dels efectes independents del gen mutat en diferents teixits, òrgans o períodes del desenvolupament, i no a causa dels efectes en cascada de la pliotropia relacional (vegeu la figura 2b). Evidentment, la pliotropia en mosaic provoca amb posterioritat efectes pliotròpics
b
P P P
Figura 2. Comparació esquemàtica dels efectes de la pliotropia relacional o no autònoma (a) i la pliotropia en mosaic o autònoma (b). Els ovals representen organismes i les figures geomètriques teixits, òrgans o qualsevol estructura que interacciona al llarg del desenvolupament. En la pliotropia relacional (a) una mutació m (llamp) en una estructura n’afecta moltes altres indirectament (no autònomament) a causa de les interaccions entre teixits i òrgans, i es produeix una gran síndrome de defectes (llamps grans). En la pliotropia en mosaic la mutació afecta només un dels teixits, òrgans o estructures, i els efectes finals (beneficiosos o no) són molt menors.
114 J. Baguñà
relacionals, més restringits, però a partir dels defectes en cada un dels teixits o òrgans alterats. Aquestes idees es validaren en seqüenciar-se les regions cisreguladores del gens del desenvolupament i en veure com, una a una, dirigeixen l’expressió del gen en llocs molt concrets i diferents l’una de l’altra. Així, el gen decapentaplegic (dpp) de Drosophila és important per determinar el patró dorsoventral de l’embrió, el patró epidèrmic, la morfogènesi de l’intestí i els patrons d’ales, potes i altres apèndixs. La família de gens Wnt (wg en Drosophila) en vertebrats és important per als patrons i la regulació de la somitogènesi, el tub neural i els neuròmers cefàlics, i també en la formació d’extremitats, plomes, pèls, epiteli intestinal i moltes altres estructures. Això es reflecteix en la grandària (diverses quilobases) que ocupen les regions cisreguladores d’aquests gens i d’altres gens del desenvolupament, comparades amb les regions equivalents (inferiors a 1 kb) dels gens implicats en processos fisiològics i cel·lulars generals. Experiments posteriors mostraren que l’expressió específica del gen en un lloc concret depenia exclusivament d’un element cisregulador (cis-regulatory element o CRE; revisat a Carroll, 2008) format només per alguns centenars de parells de bases no codificants situades en l’extrem 5´ (de vegades en el 3´) del promotor del gen (vegeu la figura 3). A part de reflectir la natura alhora conservadora i oportunista de l’evolució, l’expansió de funcions en la zona reguladora sense duplicar els gens explica la «paradoxa» que organismes de molt diferent complexitat emprin un nombre semblant de gens (vegeu la taula 1). En resum, els gens implicats en el desenvolupament del pla corporal i de la morfologia dels organismes s’expressen en diversos teixits i òrgans i en diferents estadis del desenvolupament i presenten unes regions
reguladores amb multitud d’elements en cis als quals s’uneixen una munió de factors de transcripció. Aquesta estructura modular fa possible un nombre gairebé infinit de combinacions d’elements en cis que graduen l’activitat gènica en el temps, en l’espai i en quantitat, i això impedeix que qualsevol canvi en les seqüències reguladores sigui altament disruptiu. En comparació de les potencialment més deletèries mutacions de la regió codificant, les mutacions en els elements cisreguladors semblen la font més gran de variació morfològica. ELEMENTS CISREGULADORS (CRE), XARXES GÈNIQUES (GRN) I L’EVOLUCIÓ DE LA FORMA CRE, morfologia i evolució (més aviat microevolució) Com podem lligar l’existència de múltiples CRE en les regions reguladores dels gens amb l’evolució morfològica? Per raons evidents, les primeres dades obtingudes (a partir de l’any 2000) es basaren en locus únics. Com a primer pas s’escolliren gens relacionats amb trets morfològics específics. Seguidament, es compararen simultàniament les diferències en un fenotip entre espècies (idealment properes) amb el patró d’expressió del gen en qüestió que controla aquest fenotip. Un exemple d’aquesta aproximació és el possible paper dels gens bmp4 (bone morphogenetic protein 4) i CaM (calmodulina) en la regulació de l’alçada, amplada i llargada del bec dels pinsans de les illes Galápagos (Abzhanov et al., 2004, 2006). Les dades revelaren que els becs més allargats (pinsans dels cactus) depenen de nivells alts de CaM, i els becs més alts i amples (pinsans de llavors), de nivells elevats de bmp4, i viceversa.
Com gens tan semblants generen morfologies tan diverses? 115
Tot i el seu interès, les dades no demostraven si els canvis genètics responsables dels diferents nivells d’expressió eren deguts a canvis en les regions reguladores, a canvis en les regions codificants (que donessin més estabilitat a la proteïna) o a canvis en gens reguladors de CaM i bmp4. Un altre exemple seria el paper de Notch i Distalless en la formació i les diferències en els ocels pigmentats de les ales de diferents espècies i varietats de papallones (Beldade et al., 2002). El proper pas endavant implicava estudiar directament les regions reguladores. Dos exemples són paradigmàtics. El primer és la pèrdua de les espines i plaques corporals en els peixos espinosos (sticklebacks) d’aigua dolça en comparació de les espècies marines. El gen presumptament responsable, Pitx1, no presenta variacions en la regió codificant. Per contra, la regió cisreguladora, que s’activa per formar plaques i espines,
presenta variacions clares que desactiven l’expressió del gen en les varietats d’aigua dolça, mentre les altres regions en cis que activen Pitx1 en boca, mandíbula i òrgans laterals no presentaven variacions (Shapiro et al., 2006). El segon exemple és l’anàlisi del gen Prx1 pel que fa a la diferent llargada de les extremitats anteriors entre ratpenats i ratolins. Ja que la comparació de les regions codificants de Prx1 entre el ratpenat i el ratolí mostrava només dos aminoàcids diferents que no semblaven afectar la funció de la proteïna, Cretekos i col·laboradors (2008) aïllaren un element cisregulador del gen Prx1 d’un ratpenat (extremitats llargues) i el van substituir per la regió homòloga en embrions de ratolí (extremitats curtes). El ratolí que en resultà tenia un patró diferent d’expressió del gen i les extremitats eren més llargues (no tant com les del ratpenat, però).
a
Fotoreceptors
b Neurones deuto/tri cervell
Cossos fúngics
Cossos fúngics + neurones
Cervell
Neurones SNC
Ull
Figura 3. a) Estructura del locus de la rodopsina en Drosophila. Els exons es representen en negre i els introns en gris. L’únic element cisregulador o CRE que controla l’expressió en els fotoreceptors es mostra a l’esquerra de l’inici de la transcripció (sageta). b) Estructura del locus del gen Pax6/Eyeless de Drosophila. Els exons (negre) i els introns (gris) són a la dreta de l’inici de la transcripció (sageta). De les sis regions CRE que controlen l’expressió en diferents regions, quatre estan en 5´ (esquerra) i dues en 3´ de la part codificant. (Figura modificada de Carroll, 2008.)
116 J. Baguñà
Crítiques al paper predominant de les regions cisreguladores Tot i que els exemples esmentats abans sobre el paper dels CRE en evolució (més aviat microevolució) són prou convincents, han rebut recentment dures crítiques (Hoeks tra i Coyne, 2007; Lynch i Wagner, 2008). En primer lloc, tot i admetre la importància dels canvis en les regions reguladores en l’evolució morfològica, aquests autors consideren infundat i prematur l’esbiaixat entusiasme de l’evo-devo per aquests canvis. Hoekstra i Coyne (2007) llisten trenta-cinc exemples d’evolució morfològica i fisiològica en què els canvis són a la regió codificant. Cal dir, però, que la immensa majoria es refereixen a canvis en pigmentació, resistència a insecticides i afinitats de l’hemoglobina a l’oxigen; és a dir, poc o gens relacionats amb morfologia. En segon lloc consideren que en els experiments de cisregulació, genotip i fenotip són encara massa allunyats. Per a ells, el test definitiu d’un efecte mutacional, tant de la regió codificadora com de la reguladora, és l’ús de transgènics portadors d’una mutació concreta, en un fons genètic definit, per tal de determinar molt acuradament si afecta el fenotip d’interès, i no tan sols el patró d’expressió del gen. Finalment, critiquen fortament l’argument que unes regions reguladores grans i modulars són l’únic, o el principal, mode d’evitar els efectes negatius de la pliotropia. Per a ells, altres mecanismes, tan o més importants d’evitar-la, són: a) l’especificitat de teixit de bona part (un 30 %) dels factors de transcripció, b) l’existència de nombroses duplicacions gèniques, com ho proven la doble duplicació en l’origen dels cordats i l’existència de nombroses famílies de gens, i c) l’empalmament alternatiu dels RNA, present en un 60 % de gens de ratolí i en el 80 % dels gens humans, que generen una munió de proteïnes semblants però no
idèntiques. A tot això caldria afegir la modularitat (exons) de la regió codificant dels gens i de les proteïnes resultants, i el fet que la barreja d’exons ha demostrat ser un mecanisme poderós per generar variació. És més que probable que la realitat final sigui una barreja d’ambdós tipus de canvi (és en el percentatge de cada un on hi ha la incògnita). No debades, i tal com deia Jacob (1977), l’evolució és una potinera pragmàtica i ha aprofitat sempre el que tenia a mà. GRN, morfologia i evolució (de nou, microevolució) Fins ara hem esmentat exemples de canvis en un o pocs CRE d’un únic gen. Ara bé, cada gen del desenvolupament té múltiples CRE, la qual cosa qual implica que pot ser regulat per una munió de factors de transcripció. Alhora, les proteïnes codificades pels gens del desenvolupament es poden unir també a múltiples CRE de regions reguladores de gens diana. El lligam funcional entre un factor de transcripció (la proteïna d’un gen) i un CRE d’un gen diana (regulat pel primer) és la unitat bàsica estructural de les xarxes de regulació gèniques o GRN (gene regulatory networks, Davidson, 2006). En extrapolar aquestes unitats bàsiques a molts factors de transcripció i als molts CRE dels gens del desenvolupament de programes genètics coneguts (p. ex., la segmentació de Drosophila, la formació de l’endomesoderma de l’eriçó de mar (vegeu la figura 4), el patró dorsoventral de Drosophila, les xarxes de la vulva de C. elegans i de les tràquees de Droso phila, etc.), el resultat són GRN d’un abast molt superior a l’esperat, que generen pliotropismes d’una escala increïble, el significat dels quals no es pot copsar encara. S’ha estimat (Stark et al., 2007) que per a cada un dels seixanta-set factors de transcripció de
Com gens tan semblants generen morfologies tan diverses? 117
Drosophila analitzats hi ha una mitjana de cent vint-i-quatre gens diana. Més gran encara és el nombre de gens diana regulats directament pel factor de transcripció twist de Drosophila: uns cinc-cents. Entre aquests gens diana hi ha gens implicats en proliferació, migració i morfogènesi, així com una munió de gens que codifiquen factors de transcripció (Sandmann et al., 2007). Un cop coneguts els gens d’una GRN,
els CRE de cada gen i els lligams (les interaccions o connexions) entre els gens, estarem en condicions d’entendre i, per tant, d’explicar, encara que primàriament, com s’origina una morfologia concreta. Alhora, serem capaços d’explicar com l’alteració d’un gen concret o d’una CRE d’un gen altera la connectivitat de la xarxa i genera els efectes fenotípics coneguts de determinats mutants. I més endavant podrem ge-
Figura 4. Xarxa gènica reguladora (GRN) de la formació de l’endomesoderma en l’embrió de l’eriçó de mar Strongylocentrotus purpuratus (figura adaptada de Davidson, 2006); es representen els gens principals (uns seixanta) amb les seves entrades (zones CRE) i sortides. De dalt a baix es representa la temporalitat de l’activació gènica.
118 J. Baguñà
nerar, a voluntat, nous fenotips (la majoria letals o aberrants) introduint noves interaccions entre els elements de la GRN mateixa o introduint gens externs a la GRN. Quins són els mecanismes previsibles en l’evolució de les GRN? Seguint Davidson (2006) i Carroll (2008) cal pensar en: a) cooptació de nous factors de transcripció a causa de mutacions en els CRE existents, b) cooptació d’elements transposables com a nous CRE, c) pèrdues d’unions a factors de transcripció a causa de mutacions en els CRE, i d) remodelament dels CRE en canviar el nombre, l’afinitat o la topologia dels llocs d’unió a factors de transcripció. I un paràmetre final clau, avui dia totalment inexplorat, és la genètica de poblacions de la variació i la divergència dels CRE. El pas conceptual següent serà, un cop sabudes les relacions filogenètiques entre espècies properes i una altra de més llunyana que fes de grup extern (outgroup), determinar per a una estructura concreta les GRN homòlogues de cada espècie, estudiar-ne les diferències i tractar de reproduir els canvis que, tot seguint una seqüència coherent, transformin una morfologia en l’altra. En altres paraules, fer evolucionar una GRN en una altra. GRN i l’origen de les grans innovacions evolutives (macroevolució) Si difícil és dur a terme el programa abans esbossat per a canvis microevolutius o per a canvis interespecífics, el repte d’arribar a explicar com es van originar i diversificar les grans innovacions evolutives sembla una tasca impossible avui dia. Breument, com es poden inserir el concepte i la realitat de les GRN en aquests processos macroevolutius? A hores d’ara entenem fins a cert punt els patrons de les transformacions de caràcters, els mecanismes de la genètica
de poblacions, els mecanismes moleculars que generen variació i com l’expressió gènica contribueix al desenvolupament dels caràcters morfològics. Com assenyalen Wagner i Larsson (2003), el problema, però, és que no sabem connectar aquestes peces en un continu explicatiu. Si agafem una de les transicions evolutives més conegudes, el pas d’aletes a extremitats en l’origen dels tetràpodes, partim del ferm convenciment d’estar parlant d’estructures homòlogues, d’un bon coneixement paleontològic (tot i que encara incomplet) dels nodes intermedis, i d’un bon coneixement (tot i que prou incomplet encara) dels gens i de les GRN implicades en el seu desenvolupament embrionari. Arribats aquí, com podem saber, però, quines forces selectives van actuar primer i quines després sobre els processos de desenvolupament durant el procés de canvi morfològic al llarg de 15-20 milions d’anys? Sobre la variació de quin (o quins) gens va actuar primer la selecció natural? Quin paper van tenir els imprescindibles canvis correlatius en altres estructures que imposen limitacions funcionals (tradeoffs) en l’òptim que pot assolir cada estructura individualment (Marshall, 2003)? I si de l’origen dels tetràpodes passem a la innovació en lletres majors de l’evolució, l’origen dels organismes bilaterals, la situació no és ni tan sols abordable. No hi ha fòssils, l’anatomia comparada està desbordada per les convergències, el coneixement de gens, CRE i GRN és molt incomplet i ni tan sols la filogènia molecular ha posat els investigadors d’acord al cent per cent sobre la naturalesa del primer bilateral (Baguñà et al., 2008). Cal acabar, però, en positiu, i perfilar un programa raonable per als propers 2030 anys (Koentges, 2008). El primer pas és la síntesi entre filogènia molecular, anatomia comparada i paleontologia. La filogènia molecular permet inferir, tot i que no
Com gens tan semblants generen morfologies tan diverses? 119
encara amb fiabilitat total, les relacions filogenètiques entre clades antics i, sobretot, defineix la polaritat dels canvis (la direccionalitat evolutiva). La paleontologia, juntament amb l’anatomia comparada, ajuden a la reconstrucció dels arbres filogenètics allà on no pot arribar la filogènia molecular i, molt especialment, és determinant per reconstruir els caràcters morfològics existents en els nodes intermedis d’una sèrie evolutiva. Això permet definir el que cal explicar mecanísticament. En una segona etapa, els biòlegs i genètics del desenvolupament han d’identificar les unitats o llinatges bàsics d’informació, l’alteració dels quals duu als canvis morfològics observats. I en una etapa final, els qui podríem anomenar biòlegs de sistemes (fusió de genètics del desenvolupament, bioinformàtics, enginyers genètics i biòlegs cel·lulars) haurien d’identificar, a partir de GRN homòlogues, els nusos i els motius principals, haurien d’estudiar-ne la dinàmica in vivo i in vitro i manipular-ho de manera que tot això permetés recrear al llarg de la vida d’organismes experimentals el que eufemísticament anomenem canvis clau en evolució. Un tast prometedor d’aquest programa són els treballs de Davidson i col·laboradors sobre la GRN que dirigeix l’especificació del llinatge esqueletogènic dels micròmers en l’embrió de l’eriçó de mar (Oliveri et al., 2008) i, sobretot, la comparació de les GRN homòlogues entre l’eriçó de mar i les estrelles de mar (Hinman i Davidson, 2007), grups que divergiren fa cinc-cents milions d’anys. RETORNANT A DARWIN La genètica del desenvolupament primer, la genòmica comparada després i l’evo-devo resultant, han canviat profundament la manera d’entendre els mecanismes de producció de variació i l’evolució morfològica.
La caixa negra entre genotip i fenotip que Darwin il·luminà molt feblement amb l’embriologia evolutiva, i que la síntesi moderna va mantenir en la foscor, ha estat finalment il·luminada per la biologia molecular, la genètica del desenvolupament i l’evo-devo. Aquesta nova visió ha portat a percebre que els factors de transcripció i les regions cisreguladores arrenglerades en CRE i promotors dels gens del desenvolupament són, en proporció força major que les seves regions codificants, les unitats bàsiques i els elements centrals del canvi evolutiu. Al seu torn, aquestes unitats bàsiques formen part de xarxes de regulació gènica (les GRN) que controlen la formació d’estructures concretes, executen funcions específiques i donen lloc a tipus cel·lulars definits. Aquestes xarxes s’utilitzen diferents vegades i en diferents llocs al llarg del desenvolupament, i s’han cooptat en llocs i temps diferents al llarg de l’evolució. A més, cada gen o component d’una xarxa a pot ser reclutat dins d’una nova xarxa b per evolució d’un nou CRE que el lliga a un factor de transcripció de la xarxa b, i viceversa. Això és el tinker ing, el «bricolatge» o l’adobador potiner de Jacob (1977), que subministra la variació sobre la qual opera la selecció natural postulada fa cent cinquanta anys per Darwin (i també per Wallace). La nova visió de l’evolució morfològica i de l’evolució en general és més propera a la que Darwin va albirar amb les seves idees d’unitat de tipus amb modificació que a la visió canònica de la síntesi moderna. Malgrat que coneixia molt poc del desenvolupament i res de l’herència (i de gens), Darwin va entendre el paper clau del desenvolupament en la gènesi de la variació sobre la qual finalment opera la selecció. A més, l’inesperat grau de conservació del nombre i tipus de gens al llarg de l’escala animal i el paper preponderant de les zones cisreguladores, són més propers respectivament a la
120 J. Baguñà
unitat de tipus i a la modificació darwinianes que a l’extrema diversificació de gens i a la importància de les regions codificants postulades per la síntesi. En això, el canvi conceptual i el real han estat molt profunds. El que resta, però, suprem, des de Darwin i la síntesi moderna, és el paper de la selecció natural. BIBLIOGRAFIA Abzhanov, A.; Kuo, W. P.; Hartmann, C.; Grant, B. R.; Grant, P. R.; Tabin, C. J. (2006). «The calmodulin pathway and evolution of elongated beak morphology in Darwin’s finches». Nature, 442: 563567. Abzhanov, A.; Protas, M.; Grant, B. R.; Grant, P. R.; Tabin, C. J. (2004). «Bmp4 and morphological variation of beaks in Darwin’s finches». Science, 305: 1462-1465. Baguñà, J.; Garcia-Fernàndez, J. [ed.] (2003). Evolution & Development. Int. J. Dev. Biol. (Special Issue), 47: 465-713. Baguñà, J.; Martinez, P.; Paps, J.; Riutort, M. (2008). «Back in time: a new systematic proposal for the Bilateria». Phil. Trans. R. Soc. B, 363: 1481-1491. Bateson, W. (1894). Materials for the study of variation: treated with especial regard to discontinuity in the origin of species. Londres: MacMillan. Beldade, P.; Brakefield, P. M.; Long, A. D. (2002). «Contribution of Distal-less to quantitative variation in butterfly eyespots». Nature, 415: 315-318. Carroll, S. B. (2008). «Evo-Devo and an expanding evolutionary synthesis: a genetic theory of morphological evolution. Cell, 134: 25-36. Carroll, S. B.; Grenier, J. K.; Weatherbee, S. D. (2005). From DNA to diversity. molecular genetics and the evolution of animal design. 2a ed. Malden: Blackwell. Cretekos, C. J.; Wang, Y.; Green, E. D.; NISC Comparative Sequencing Program; Martin, J. F.; Rasweiler IV, J. J.; Behringer, R. R. (2008). «Regulatory divergence modifies limb length between mammals». Genes Dev., 22: 141-151. Darwin, C. (1859). On the origin of species. Londres: John Murray. Darwin, C.; Wallace, A. R. (1858). «On the tendency of species to form varieties; and on the perpetuation of varieties and species by natural means of selection». J. Proc. Linn. Soc. London. Zool., 3: 46-50. Davidson, E. H. (2006). The Regulatory genome. Gene
regulatory networks in development and evolution. Àmsterdam: Elsevier. Ferguson, E. L.; Sternberg, P. W.; Horvitz, H. R. (1987). «A genetic pathway for the specification of the vulval cell lineages of Caenorhabditis elegans». Nature, 326: 259-267. Fisher, R. A. (1930). The general theory of natural selection. Oxford: Clarendon. Gilbert, S. F. (2003). «The morphogenesis of evolutionary developmental biology». Int. J. Dev. Biol., 47: 467-477. Grens, A.; Mason, E.; Marsh, J. L.; Bode, H. R. (1995). «Evolutionary conservation of a cell fate specification gene: the Hydra achaete-scute homolog has proneural activity in Drosophila». Development, 121: 4027-4035. Hadorn, E. (1961). Developmental genetics and lethal factors. Londres: Methuen & Co Ltd, John Wiley & Sons, Inc. Hinman, V. F.; Davidson, E. H. (2007). «Evolutionary plasticity of developmental gene regulatory network architecture». Proc. Natl. Acad. Sci. USA, 104: 19404-19409. Hoekstra, H. E.; Coyne, J. A. (2007). «The locus of evolution: Evo Devo and the genetics of adaptation». Evolution, 61: 995-1016. Jacob, F. (1977). «Evolution and tinkering». Science, 196: 1161-1166. Jacob, F.; Monod, J. (1961). «Genetic regulatory mechanisms in the synthesis of proteins». J. Mol. Biol., 3: 318-356. Jürgens, G.; Mayer, U.; Torres Ruiz, R. A.; Berleth, T.; Miséra, S. (1991). «Genetic analysis of pattern formation in the Arabidopsis embryo». Development, supl. 1: 27-38. King, M. C.; Wilson, A. C. (1975). «Evolution at two levels in humans and chimpanzees». Science, 188: 107-116. Koentges, G. (2008). «Evolution of anatomy and gene control». Nature, 451: 658-663. Kuserow, A.; Pang, K.; Sturm, C. [et al.] (2005). «Unexpected complexity of the Wnt gene familiy in a sea anemone». Nature, 433: 156-160. Lynch, V. J.; Wagner, G. P. (2008). «Resurrecting the role of transcription factor change in developmental evolution». Evolution, 62: 2131-2154. Marshall, C. R. (2003). «Nomethetism and understanding of the Cambrian “explosion”». Palaios, 18: 195-196. Monod, J.; Jacob, F. (1961). «General conclusions–teleonomic mechanisms in cellular metabolism, growth and differentiation». Cold Spring Harb. Symp. Quant. Biol., 26: 389-401. Nüsslein-Volhard, C.; Wieschaus, E. (1980). «Muta-
Com gens tan semblants generen morfologies tan diverses? 121
tions affecting segment number and polarity in Drosophila». Nature, 287: 795-801. Oliveri, P.; Tu, Q.; Davidson, E. H. (2008). «Global regulatory logic for specification of an embryonic cell lineage». Proc. Natl. Acad. Sci. USA, 105: 5955-5962. Sakarya, O.; Armstrong, K. A.; Adamska, M.; Adamski, M.; Wang, I.; Tidor, B.; Degnan, B. M.; Oakley, T. H.; Kosik, K. S. (2007). «A post-synaptic scaffold at the origin of the animal kingdom». PLoS ONE, 2: e506. Sandmann, T.; Grardot, C.; Brehme, M.; Tongprasit, W.; Stole, V.; Furlong, E. E. (2007). «A core transcriptional network for early mesoderm development in Drosophila melanogaster». Genes Dev., 21: 436-449. Shapiro, M. D.; Marks, M. E.; Peichel, C. L.; Blackman, B. K.; Nereng, K. S.; Jonsson, B.; Schluter, D.;
Kingsley, D. M. (2006). «Genetic and developmental basis of evolutionary pelvic reduction in threespine stickleback». Nature, 439: 1014. Stark, A.; Lin, M. F.; Kheradpourt, P. [et al.] (2007). «Discovery of functional elements in 12 Drosophila genomes using evolutionary signatures». Nature, 450: 219-232. Valentine, J. W. (2004). On the origin of phyla. Chicago, Londres: The University of Chicago Press. Wagner, G. P.; Larsson, H. C. E. (2003). «What is the promise of developmental evolution? III. The crucible of developmental evolution». J. Exp. Zool., 300B: 1-4. Watson, J. D.; Crick, F. H. C. (1953). «Molecular structure of nucleic acids. A structure for deoxyribose nucleic acids». Nature, 171: 964-996.
DOI: 10.2436/20.1501.02.81
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 123-150
L’ESPÈCIE HORITZONTAL Antonio Fontdevila Grup de Biologia Evolutiva, Departament de Genètica i Microbiologia, Universitat Autònoma de Barcelona. Adreça per a la correspondència: Antonio Fontdevila. Departament de Genètica i Microbiologia, Universitat Autònoma de Barcelona. Campus de Bellaterra, edifici C. 08193 Bellaterra. Adreça electrònica: antonio.fontdevila@uab.es. RESUM El concepte d’espècie biològica no ha resolt el problema de la identitat de les espècies perquè la moderna genòmica comparada ha desvetllat que la introgressió és molt més freqüent del que semblava. Per tant, l’aïllament reproductiu no sembla la causa primordial ni de l’origen ni del manteniment de les espècies. El model al·lopàtric d’especiació, considerat com el més general, no explica molts casos d’especiació simpàtrica ben documentats. Més aviat, avui dia el model més afavorit és un escenari en el qual s’intercalen episodis simpàtrics i al·lopàtrics, del qual l’origen dels peixos cíclids és un bon exemple. Però l’intercanvi híbrid de gens, sense duplicació del genoma, és també un punt de partida de noves espècies en moltes plantes i animals. En aquests casos, com el de les espècies híbrides d’Helianthus, la selecció per fertilitat i la selecció ecològica donen suport el paper decisiu de la selecció natural en l’especiació. Finalment, l’intercanvi horitzontal de gens és cada vegada més evident no solament en el món dels procariotes sinó també en el dels eucariotes. Totes aquestes dades obliguen a considerar que l’arbre de la vida és més aviat una xarxa, però el que fan és sobretot reivindicar el paper fonamental que Darwin havia donat a la selecció natural, enfront de l’aïllament, en l’especiació. Paraules clau: especiació, aïllament reproductiu, selecció natural, flux gènic, hibridació. THE HORIZONTAL SPECIES SUMMARY The biological concept of species has not solved the problem of the species identity because current studies of comparative genomics have revealed a higher than expected fre-
124 A. Fontdevila
quency of introgression. This evidence casts serious doubts on the prime role of the reproductive isolation in the origin and maintenance of species. The allopatric model of speciation, formerly viewed as the most frequent, fails to explain many well documented cases of sympatric speciation. Rather the allo-sympatric model, in which several allopatric and sympatric episodes are interspersed in time, is currently favoured to explain many speciation study cases such as the origin of cichlid fishes. Moreover, the genic exchange through hybridisation, without whole genome duplication, is often the starting point of new species in many plants and also in animals. In many of these cases, as in the hybrid species of Helianthus, selection for fertility and ecological selection have been documented, bolstering the decisive role of natural selection in speciation. Last but not least, comparative phylogenetic studies have shown that horizontal gene exchange is also a plausible phenomenon both in prokaryote and eukaryote domains of life. Taken together, all this evidence suggests that biodiversity should be pictured rather by a web of life. But, what is most relevant, it vindicates Darwin’s tenet that natural selection, versus reproductive isolation, is the most active mechanism in the origin of species. Key words: speciation, reproductive isolation, natural selection, gene flow, hybridization. EL MISTERI DELS MISTERIS Darwin, en el primer paràgraf de L’origen de les espècies, atribueix a Hershel, sense citar el seu nom, la famosa frase que diu que el procés de l’origen de les espècies és «el misteri dels misteris». Aquesta paràfrasi és el resultat d’una llarga conversa amb aquest famós físic quan el Beagle va parar al Cap de Bona Esperança de tornada cap a Anglaterra. En aquest moment Darwin no tenia clar com es formaven les espècies, i possiblement tampoc no podia sospitar que dedicaria la resta de la seva vida a esbrinar aquest misteri. Més tard Darwin va resumir l’evolució per selecció natural com a divergència amb modificació. Aquesta contribució magistral de Darwin genera la seva imatge de la biodiversitat com un arbre, l’única figura de la seva obra magna L’origen de les espècies, les branques del qual representen la contínua diversificació del món orgànic. La divergència entre poblacions, promoguda per la selecció natural, i no la creació independent, és, per tant, el fonament de la defini-
ció d’espècie. Però, quanta divergència es necessita perquè dues poblacions siguin considerades espècies diferents és encara un tema de controvèrsia. Darwin és plenament conscient d’aquest problema quan planteja la dificultat de distingir les espècies i pràcticament arriba a negar la seva realitat quan diu que «la quantitat de diferències considerades necessàries per donar a dues formes el rang d’espècie és totalment indefinit». El concepte tipològic d’espècie, prevalent abans de la revolució darwinista, veu el món biològic com un conjunt de tipus o classes (les espècies) independents els uns dels altres. La variabilitat entre els individus membres de cada espècie és, segons aquest concepte tipològic, irrellevant. Per contra, el concepte poblacional darwinista eleva aquesta variabilitat intraespecífica, la seva variabilitat genètica, al rang de substrat evolutiu de l’espècie, la qual, sotmesa a les lleis de l’evolució (la selecció natural, la mutació i la deriva genètica, principalment) permet entendre el veritable significat de l’espècie i també el seu origen. Però
L’espècie horitzontal 125
també planteja el problema de la identitat de les espècies. El pensament poblacional darwinista requereix que, independentment de quin mecanisme de divergència actuï, dues espècies mantinguin la seva identitat genètica diferencial evitant l’efecte uniformitzador de l’intercanvi de gens. Ja que el mecanisme més reconegut d’intercanvi gènic, almenys en organismes sexuals, és el sexe, no ens estranya que l’aïllament reproductiu fos el primer que se’ls vagi ocórrer als evolucionistes clàssics, Darwin entre ells, com a mecanisme per mantenir la identitat de les espècies. Dobzhansky (1935), un dels pares de la teoria sintètica de l’evolució, va ser pioner a proposar l’aïllament reproductiu com a criteri definidor del concepte d’espècie quan diu que «una espècie és un grup d’individus completament fèrtils entre si, però incapaços d’encreuar-se amb altres grups similars a causa de les seves propietats fisiològiques (ja sigui produint incompatibilitats entre els progenitors o l’esterilitat dels híbrids, o ambdues coses)». Aquesta línia de pensament va ser completada i popularitzada per Mayr (1942), un altre pare de la teoria sintètica, el qual va definir el concepte biològic d’espècie (CBE): «les espècies són grups de poblacions naturals amb capacitat d’encreuament, real o potencial, els quals estan reproductivament aïllats d’altres grups semblants». Durant dècades aquest concepte ha estat adoptat per moltes generacions d’evolucionistes com a criteri per distingir les espècies, sobretot perquè permet dissenyar amb claredat un projecte de recerca en especiació. La capacitat de distingir les espècies mitjançant el seu aïllament reproductiu és un gran avenç en la teoria de l’especiació perquè ens permet establir la hipòtesi que l’origen de les espècies és equivalent a l’origen dels mecanismes d’aïllament. I aquest ha estat exactament el
paradigma de la recerca en especiació de la majoria dels treballs del segle passat. El misteri de l’especiació semblava, doncs, resolt. Però, ho està? Al llarg d’aquest treball veurem que les dades recents aportades per l’estudi dels marcadors moleculars i de la genòmica comparada ens diuen que la introgressió de gens entre espècies és un fenomen molt més freqüent del que els pares del CBE haurien sospitat. Aquestes dades obliguen a reconsiderar no solament el concepte d’espècie, sinó que ens donen una visió molt més pluralista del seu origen. ELS ESCENARIS DE L’ESPECIACIÓ Després de moltes dècades de recerca en especiació és clar que, exceptuant alguns casos de reforçament de l’aïllament (Dob zhansky, 1937, vegeu el requadre 1), l’aïllament reproductiu no és l’objecte directe del procés d’especiació sinó el subproducte que acompanya el procés de divergència de l’especiació. Per tant, resulta més adient canviar el terme mecanisme per barrera d’aïllament. La confusió entre mecanisme i barrera es fa palesa quan considerem que l’aïllament reproductiu és un patró que sorgeix, encara que no sempre, com a subproducte del procés d’especiació. Aquesta distinció conceptual entre procés i patró és fonamental per entendre els mecanismes d’especiació. L’observació d’un patró ens dóna pistes per formular hipòtesis sobre els mecanismes causals, però aquests mecanismes s’han de provar. Sovint hi ha diverses hipòtesis que permeten explicar el mateix patró i, per tant, el patró, per si mateix, només serveix per excloure certs mecanismes però no ens assegura «el mecanisme» que l’ha generat. Per exemple, quan veiem que dues espècies ocupen un mateix hàbitat i estan aïllades reproductivament, aquest patró no ens diu gaire cosa dels mecanismes que les han
126 A. Fontdevila
Requadre 1: El model al·lopàtric i el reforçament En el model biogeogràfic de l’especiació al·lopàtrica (vegeu la figura) les noves espècies es formen en zones de la població original (i) separades mitjançant barreres geogràfiques (fase ii de la figura). Aquest aïllament afavoreix la divergència genètica entre les poblacions. Com a subproducte d’aquesta divergència es generen canvis genètics en el sistema reproductiu o del desenvolupament, que es manifesten en forma de barreres d’aïllament reproductiu si aquestes poblacions es posen en contacte en el futur (fase iii de la figura). En aquesta fase de contacte secundari si l’aïllament és total les poblacions mantenen la seva integritat com a dues espècies noves. La coexistència entre ambdues depèn, aleshores, del grau de competència. Però si l’aïllament no s’ha completat poden succeir diverses coses. Una possibilitat és que s’encreuin i l’aptitud dels híbrids no sigui inferior a la dels pares. En aquest cas es produirà flux gènic, que si és molt gran farà que les dues espècies incipients es fusionin en una de sola. Depenent del flux gènic, de l’aptitud dels híbrids i de les condicions ecològiques també és possible que les noves espècies puguin mantenir un cert grau d’introgressió gènica sense perdre la seva identitat, o bé que es generin noves espècies híbrides. Hi ha, però, un altre possible procés que condueix a un augment de l’aïllament prezigòtic. Suposem que l’espècie a (grisa) s’encreua parcialment amb l’espècie b (de punts) en la zona de contacte secundari, però que els híbrids a × b tenen una aptitud baixa (són menys fèrtils o menys viables). Suposem també que cada espècie està formada per dues classes d’individus, els que s’aparellen amb els de la seva pròpia espècie (homogàmics) i els que ho fan amb els de l’altra espècie (heterogàmics). És evident que els heterogàmics tindran una aptitud més baixa que els homogàmics perquè els seus descendents híbrids a × b seran menys fèrtils o viables que els descendents dels individus homogàmics. La selecció afavorirà, doncs, els encreuaments homogàmics i, per tant, els gens que determinen l’homogàmia aniran augmentant en ambdues espècies incipients. Al final aquests gens es fixaran, tots els individus de cada espècie seran homogàmics i s’haurà completat l’aïllament prezigòtic sexual. Aquest procés es coneix com de reforçament de l’aïllament reproductiu en el contacte secundari, i per a alguns autors és una fase fonamental de l’especiació al·lopàtrica. Des de la seva formulació moderna per part de Dobzhansky el 1937, la hipòtesi del reforçament ha passat per onades alternatives d’acceptació i rebuig, d’una manera que recorda «les fluctuacions del mercat de valors de la borsa», en paraules de Noor (1999), un estudiós d’aquest mecanisme. El fet que molts resultats experimentals que s’han presentat a favor del reforçament es poden explicar també per altres processos ha contribuït a aquesta manca periòdica de credibilitat. Una de les evidències més utilitzades és la comparació del grau d’aïllament prezigòtic entre poblacions simpàtriques i al·lopàtriques de la mateixa espècie. És clar que si el reforçament és un
L’espècie horitzontal 127
fet les poblacions simpàtriques han de presentar menys encreuaments heterogàmics interespecífics que les poblacions al·lopàtriques. Això és el que es troba moltes vegades. Però el cas recíproc no és cert: dues poblacions que han completat l’aïllament reproductiu postzigòtic, perquè els seus híbrids són totalment estèrils o inviables, també poden augmentar en simpatria l’aïllament prezigòtic. Aquest procés, sense flux gènic interespecífic, no té rés a veure amb el reforçament. De fet, és un cas particular d’un mecanisme molt conegut pels ecòlegs denominat desplaçament de caràcter, pel qual les poblacions simpàtriques de dues espècies pròximes sempre es diferencien més (en caràcters molt diversos) que les al·lopàtriques. En el cas de l’aïllament reproductiu seria un desplaçament de caràcters reproductius. Resumint, és indubtable que algunes dades i models teòrics donen suport al reforçament. Però això «no demostra que el reforçament és freqüent, ni molt menys ubic», tal i com afirmen Coyne i Orr (2004,), dos investigadors que han aportat proves que hi donen suport. En tot cas, les evidències actuals ens permeten mantenir que en la gran majoria dels casos l’aïllament reproductiu és un subproducte del procés, i no el procés mateix d’especiació. produït, ni si aquests mecanismes han actuat en simpatria o no. Necessitem altres dades paleontològiques, moleculars, genètiques, genòmiques o fisiològiques per reconstruir l’escenari on s’han originat les espècies i les forces evolutives responsables. Els evolucionistes clàssics de «línia dura» defensors del CBE, com Mayr i Dobzhansky, afirmen amb fermesa que és impossible mantenir la integritat (cohesió) d’una espècie en absència de barreres al flux gènic. Malgrat tot, els recents estudis moleculars i genòmics (vegeu més endavant) demostren que les taxes de flux gènic interespecífic són molt altes i posen en dubte la necessitat absoluta de l’aïllament per explicar l’origen i el manteniment de les espècies. Tant és així que el nombre de «desertors» del paper absolut de l’aïllament reproductiu en l’especiació va augmentant constantment, la qual cosa es fa palesa quan Coyne i Orr (2004, p. 30), dos «durs» de nova generació, concedeixen que «les diferents espècies es caracteritzen per un aïllament reproductiu substancial però no necessàriament complet». Abans d’aprofundir en les forces responsables de la divergència específica, és con-
venient veure quins patrons (escenaris) biogeogràfics es preveuen actualment més proclius per a l’origen de les espècies, i també discutir la seva incidència relativa. L’escenari al·lopàtric L’especiació al·lopàtrica, el model més popular que proposa la necessitat d’una barrera geogràfica entre les poblacions per a la diferenciació, és una idea original de Moritz Wagner, un naturalista del segle xix coetani de Darwin. Wagner va estar influït per l’observació del fet que a cada vorera de molts rius algerians habitaven espècies germanes diferents de coleòpters. També Wallace (1852), el codescobridor de la selecció natural, va observar aquest mateix patró en els primats de la conca amazònica. És interessant que Darwin va fer una observació semblant amb les tortugues, les aus i les plantes de les diferents illes de les Galápagos. Però Darwin, que coneixia els treballs de Wagner, mai no va estar totalment d’acord amb aquestes idees. En l’última edició de L’origen de les espècies diu:
128 A. Fontdevila
«Wagner ha demostrat que el servei que aporta l’aïllament en prevenir els encreuaments entre les varietats de nova formació és probablement més gran del que jo mateix havia suposat. Però [...] jo no puc estar d’acord de cap manera amb aquest naturalista en el fet que la migració i l’aïllament són necessaris per a la formació de noves espècies.» (Darwin, 1869, p. 149). Un comentari bastant contundent i negatiu sobre la necessitat del model al·lopàtric. Les paraules de Darwin semblen premonitòries de la controvèrsia actual sobre el paper relatiu de l’aïllament i de la selecció natural en l’especiació. Mayr va ressuscitar la idea de Wagner més de mig segle després, inspirat per l’expedició de tres anys que, com a recol·lector de mostres d’aus per al milionari Rotschild, va fer a Nova Guinea. Aquesta expedició i d’altres a les illes dels mars del Sud li van fer veure de seguida que els braços de mar i les serralades de muntanyes marcaven sovint els límits entre espècies germanes d’aus molt properes, un patró de distribució geogràfica que suggeria un model al·lopàtric d’especiació, tal i com ell el va anomenar. D’ençà els anys quaranta Mayr no solament ha demostrat que el model al· lopàtric és un fet, sinó que ha defensat aferrissadament que és el model més freqüent, i probablement l’únic, que proporciona a les poblacions divergents l’aïllament necessari perquè esdevinguin espècies noves (Mayr, 1942). Però malgrat que molts patrons actuals de distribució geogràfica de les espècies són perfectament compatibles amb el resultat d’una especiació al·lopàtrica, això no garanteix que les espècies actualment al· lopàtriques s`hagin originat a causa de les barreres geogràfiques. Necessitem proves d’aquest fet. La teoria neutralista de l’evolució molecular (Kimura, 1968) proporciona un rellot-
ge molecular (Zuckerkandl i Pauling, 1962) que ens permet calibrar el temps de divergència entre dues espècies germanes i veure si coincideix amb el temps en què va aparèixer la barrera geogràfica d’aïllament. Això és el que els investigadors han fet en molts casos que s’havien explicat mitjançant el model al·lopàtric, i els resultats han estat diversos. L’istme de Panamà té una edat d’uns tres milions d’anys. Aquest barrera va dividir en dos un mar que durant milions d’anys havia allotjat milers d’espècies, les poblacions de les quals es van separar en dues subpoblacions, l’oriental al mar Carib i l’occidental a l’oceà Pacífic. Els investigadors han tret profit d’aquest escenari, que s’ajusta perfectament a un model al·lopàtric, per estudiar els processos d’especiació entre els parells d’espècies germanes (geminades) originades a una banda i l’altra de l’istme. En conjunt, aquests estudis, que inclouen eriçons de mar, peixos, crustacis i isòpodes, confirmen que el temps de divergència estimat segons el rellotge molecular del DNA coincideix amb el temps d’aixecament de l’istme. És interessant assenyalar, no obstant això, que no tots els parells d’espècies geminades van quedar separades simultàniament. Les espècies geminades dels ambients de manglars són les menys diverses, tal i com s’espera si aquest hàbitat superficial ha estat el més tardà a dividir-se, mentre que les espècies que ocupen zones més profundes van començar la seva separació molt més aviat, d’acord amb l’origen inicial de les barreres tectòniques al fons marí, i són les més diverses. En resum, aquest escenari està d’acord amb el model al·lopàtric, encara que les barreres geogràfiques no són impermeables i generen divergències no simultànies en diferents parells d’espècies geminades (Knowlton i Weight, 1998). A part de les plaques tectòniques, hi ha altres causes de barreres geogràfiques. Les
L’espècie horitzontal 129
glaciacions dels darrers 2,5 milions d’anys han generat canvis climàtics responsables de grans episodis d’aïllament de les poblacions (Hewitt, 2000, 2004). Si ens restringim a la darrera època glacial sabem que fa entre 18.000 i 24.000 anys el nord del nostre hemisferi estava cobert per un casquet de gel i el sud estava cobert principalment per tundra, semblant a la que ocupa actualment el nord d’Europa. En aquest escenari les poblacions de les espècies del nord es devien haver refugiat als boscos més meridionals i les poblacions de les espècies d’altitud ho devien haver fet a les parts baixes de les muntanyes. Molts biòlegs evolucionistes han tractat d’explicar la diversitat actual a Europa i Amèrica del Nord com el resultat de la colonització recent de les espècies originades en les poblacions aïllades dels refugis meridionals quan l’escalfament va fondre els casquets del nord. Les aus de l’hemisferi nord mostren conjunts de parells d’espècies germanes, que ocupen les parts est i oest de cada continent, les quals han estat considerades com el resultat de l’especiació al·lopàtrica durant les glaciacions del plistocè recent (fa menys de 250.000 anys). Klicka i Zinck (1997) han estudiat, utilitzant seqüències de l’mtDNA, trenta-cinc parells d’espècies germanes d’ocells d’Amèrica del Nord, de les quals només onze confirmen que la separació va ocórrer en el quaternari. La resta d’espècies va divergir molt abans, algunes abans de les èpoques glacials del plistocè, és a dir, fa més de tres milions d’anys, la qual cosa permet afirmar als investigadors que «el paradigma establert que proclama l’origen de molts ocells d’Amèrica del Nord com a conseqüència d’aquestes glaciacions és una fal· làcia». Aquest fort cop de gràcia al paradigma dels orígens plistocènics recents ens fa ser més cautelosos quan tractem de derivar processos (el paper de les barreres geogràfiques) a partir de patrons (la distribució
de les espècies). La conclusió final és que la majoria d’espècies d’ocells (el 80 %) ha iniciat la seva divergència almenys fa un milió d’anys, la qual cosa contradiu el model exclusiu de les barreres del plistocè recent i suggereix un escenari molt més complex amb mecanismes diversos (Klicka i Zink, 1999). L’escenari simpàtric La manca d’una barrera geogràfica permanent en el procés d’especiació, com demostra l’exemple anterior, dóna suport a la hipòtesi que, sense treure importància a les barreres geogràfiques en la disminució del flux gènic entre les poblacions, les barreres no estan soles en el procés de l’especiació. Una mirada aprofundida als patrons biogeogràfics de les colonitzacions plistocèniques il·lustra la complexitat del procés. Les barreres glacials es formen i desapareixen ràpidament, i canvien la distribució de les espècies, però també les oscil·lacions climàtiques són ràpides i obliguen les espècies a adaptar-se a nous ambients. Molt possiblement és l’efecte combinat dels canvis biogeogràfics i ambientals el que permet l’acció conjunta dels factors demogràfics i selectius en l’evolució de les espècies. Aquest escenari pluralista apareix cada vegada que aprofundim en l’estudi d’un cas ben documentat, com és el de l’especiació de Rhagoletis, una mosca de la fruita. La història comença vuit anys després de la publicació de L’origen de les espècies, quan Benjamin Walsh, un entomòleg antic company d’estudis de Darwin a Cambridge, va comunicar que la mosca Rhagoletis pomonella, que s’alimenta de les plantes d’arç blanc (gènere Crataegus) als EUA, havia envaït les pomeres (gènere Malus) d’origen europeu del nord-est dels EUA, i que tenia la impressió que la mosca podria haver evolucionat
130 A. Fontdevila
envers una nova espècie incipient a causa d’aquest canvi d’hoste. Darwin, que mantenia una activa correspondència amb Walsh, fa esment d’aquesta noticia en la cinquena edició de L’origen (Darwin, 1869, p. 57), però es mostra poc inclinat a acceptar que aquesta forma invasora sigui una nova espècie. Malgrat aquest escepticisme de Darwin, ell mateix havia manifestat abans la possibilitat de l’especiació per salt d’hoste. Aquest és probablement un dels primers registres d’especiació sense necessitat de barreres geogràfiques en la literatura científica. El cas Rhagoletis va quedar ofegat, i oblidat, per un mar de literatura que afavoria el model al·lopàtric, fins que quasi un segle després, Guy Bush, un doctorand a Harvard, va descobrir el treball de Walsh i va veure que aquest insecte, com tots els insectes fitòfags, tenia les característiques precises per especiar en simpatria, és a dir, sense barreres geogràfiques. Paradoxalment, Bush tenia Mayr en el seu comitè de tesi, i quan li va suggerir fer un estudi sistemàtic i citogenètic del gènere Rhagoletis com a tesi doctoral, Mayr és va mostrar entusiasta, almenys perquè, segons Mayr, aquest estudi acabaria definitivament amb aquest exemple no resolt d’especiació simpàtrica, tal i com explica el mateix Bush (1998). Aquest era el moment en què Mayr estava acabant el seu llibre Espècies animals i evolució (Mayr, 1963), en el qual defensa la universalitat de l’especiació al·lopàtrica i refusa tota possibilitat d’especiació simpàtrica. El menyspreu de Mayr per l’especiació simpàtrica queda reflectit quan diu: «Es podria pensar que no és necessari dedicar gaire temps a aquest tema, però l’experiència passada ens permet predir amb seguretat que aquest assumpte anirà sortint regularment. L’especiació simpàtrica és com l’Hidra [...] que genera dos
caps nous sempre que se li talla un dels caps antics». És evident que Mayr volia tallar d’una vegada tots els caps de l’Hidra amb el treball definitiu de la tesi de Bush. Però la història ha estat molt diferent, ja que Bush i els seus col·laboradors han desenvolupat durant més de trenta anys un cos de coneixements que ha desafiat l’exclusivitat del model al·lopàtric, i ha induït, més que parat, un creixement recurrent dels caps de l’Hidra de Mayr. Aquest treball experimental de l’equip de Bush comprèn múltiples aspectes del procés d’especiació simpàtrica, des de la identificació dels senyals i els caràcters responsables del reconeixement de les plantes hoste i el comportament d’aparellament (Bush, 1993) i les bases genètiques de l’estructura poblacional de les races d’hoste (Feder et al., 1988), fins a l’establiment del paper de la diapausa en l’adaptació a l’hoste (Feder et al., 1997) i, finalment, l’elaboració d’un model general d’especiació simpàtrica (Bush, 1994). Durant dècades aquest estudi ha estat considerat com el paradigma de l’especiació simpàtrica. Actualment, les poblacions de Rhagoletis associades a hostes diferents són veritables races d’hoste que mostren oviposició preferencial per la planta en què es desenvolupen les larves i també diferències genètiques en el temps de desenvolupament. Aquests canvis evolutius s’han produït en menys de cent cinquanta anys després del salt d’hoste i estan d’acord amb l’esquema de l’especiació simpàtrica (vegeu el requadre 2). Moltes altres radiacions d’insectes que s’alimenten d’una sola planta (monòfags), com la radiació de les més de set-centes vespes que crien específicament en una sola espècie de figuera, poden explicar-se segons l’especiació simpàtrica. Hi ha molts altres exemples d’especiació simpàtrica en
L’espècie horitzontal 131
insectes fitòfags. Entre els millor estudiats tenim l’himenòpter Pontania salicis, les races monòfagues del qual mostren experimentalment un fort efecte de Hopkins (vegeu el requadre 2); també les nou espècies d’homòpters estretament relacionades (sinmòrfiques) del gènere Enchenopa, que presenten una sincronia d’eclosió larvària amb la floració de les seves plantes hostes que suggereix una evolució de l’aïllament reproductiu per al·locronia (Wood, 1993), i finalment el cas de les setanta espècies d’arnes del gènere Yponomeuta, la majoria monòfagues de plantes de la família Celastraceae, però algunes associades a les famílies de les pomeres (Rosaceae) i dels salzes (Salicaceae) (Menken i Roessingh, 1998). L’argument més potent de salt d’hoste en Yponomeuta prové de l’observació el 1985 d’una invasió massiva de Y. padellus pertot dels Països Baixos associada als servers (Sorbus aucuparia), una planta que mai no havia estat ocupada per aquestes arnes en aquest país. Inicialment es va pensar que provenia d’Escandinàvia, on s’alimenta de servers, però els marcadors moleculars van identificar les poblacions holandeses com a autòctones. Schilthuizen, un evolucionista holandès, creu que en aquest cas s’ha enxampat in fraganti el salt d’hoste, un episodi normalment molt difícil d’observar en l’especiació simpàtrica. Els exemples possibles d’especiació simpàtrica en els insectes monòfags són tan nombrosos que el mateix Mayr els accepta quan diu que aquest «és l’únic cas conegut que indica la possible presència d’una especiació simpàtrica incipient». Si tenim en compte que aquests insectes representen un 40 % de les espècies animals, l’especiació simpàtrica no es pot obviar per la seva raresa. Però és que tenim més exemples documentats d’especiació simpàtrica en altres grups zoològics com els peixos i els mol·luscs (vegeu el requadre 3).
El model al·losimpàtric Recentment nous estudis han aconseguit completar la història de l’especiació de Rhagoletis, la qual ha esdevingut més complexa. Feder, un antic doctorand de Bush, i els seus col·laboradors, han estudiat la filogeografia i la filogènia del complex Rhagoletis, un conjunt que comprèn més de sis espècies sinmòrfiques distribuïdes des de les terres altes de l’Altiplano mexicà fins al nord-est dels EUA. Aquest treball, resumit a Feder et al. (2005), demostra una diferenciació genètica entre les poblacions mexicanes i les del nord associada amb un polimorfisme cromosòmic d’inversions. Aquest resultat, juntament amb l’observació que les inversions contenen gens de diapausa implicats en el salt d’hoste, ha estat interpretat com que fa un milió i mig d’anys es va produir un aïllament geogràfic a Mèxic que va dividir en dues poblacions (la del nord i la del sud) la població original. Més tard, ambdues poblacions es van posar en contacte (secundari) durant un llarg període en el qual va es inversions del sud es van introgressar en les poblacions del nord. Aquest flux cromosòmic va introduir els gens de diapausa en les poblacions d’Amèrica del Nord, la qual cosa hauria ajudat els salts d’hoste cap a plantes amb diferents períodes de fructificació. La història es completa amb tot un seguit d’episodis d’aïllament i contactes secundaris que podrien estar relacionats amb les glaciacions plistocèniques (vegeu la figura 1). Aquest cas en què s’intercalen episodis simpàtrics i al·lopàtrics no és únic. Els cíclids, una família de més de mil cinc-cents peixos tropicals endèmics dels grans llacs del Rift de l’Àfrica oriental, il·lustren un exemple explosiu d’especiació al·losimpàtrica (vegeu, per a una revisió, Kocher, 2004). Així, el llac Victòria, després d’assecar-se, es va inundar novament fa uns quinze mil anys i
132 A. Fontdevila
Requadre 2. Algunes condicions del model simpàtric Quines són les condicions que afavoreixen l’especiació en simpatria? En el model al· lopàtric la interrupció del flux gènic mitjançant barreres geogràfiques afavoreix la divergència, però en el model simpàtric hi ha d’haver altres mecanismes afavoridors de la diferenciació. La genètica de poblacions ens explica que certes condicions ecològiques poden promoure en simpatria la divisió d’una població. En un organisme diploide i un model genètic senzill determinat per un sol gen amb dues variants (al·lels: A, a), si cada genotip extrem (AA, aa) està millor adaptat a un hàbitat diferent (p. ex., en el cas d’un insecte fitòfag, a dues plantes diferents) és teòricament possible que la selecció d’hàbitat afavoreixi la separació de la població en dues parts. Però aquest model és molt ineficaç si l’aparellament és a l’atzar, perquè el flux gènic és aleshores molt gran. Tanmateix, si un altre sistema genètic controla simultàniament que l’aparellament es faci entre individus del mateix genotip (aparellaments homogàmics) el flux gènic disminueix i la divisió poblacional es potencia. Per tant, la diversificació requereix, almenys, que la selecció d’hàbitat i la selecció homogàmica actuïn conjuntament. Aquest model teòric, proposat per Maynard Smith el 1966, va ser rebut amb escepticisme durant molt temps, però els estudis més recents hi donen suport. Ja el 1917 Hopkins, un entomòleg, va descriure que els insectes les larves dels quals s’alimenten d’una certa planta tendeixen a dipositar els ous en la mateixa espècie de planta on han crescut les larves. Aquesta elecció d’hàbitat (efecte de Hopkins) reforça encara més la selecció d’hàbitat i, juntament amb la selecció homogàmica producte de la tendència d’aparellar-se sobre el mateix hoste, constitueixen probablement les condicions inicials més importants per iniciar un procés de divergència simpàtrica. Posteriorment, la incorporació de nous caràcters adaptatius diferenciadors, com la cria en èpoques diferents (al· locronia reproductora) i la divergència sexual, pot conduir a una alta especialització en nous hostes i a un aïllament reproductiu sense barreres geogràfiques. I això és exactament el que anomenem una especiació simpàtrica.
Requadre 3. El cas Littorina L’observació de possibles successos d’especiació simpàtrica en els quals es puguin estudiar experimentalment els components selectius són poc freqüents. Però el cas de Littorina és una excepció. Aquest gasteròpode marí de baixa dispersió mostra un dimorfisme associat als microhàbitats de la zona intermareal. Rolán-Alvarez (2007) i els seus col·laboradors han demostrat que la morfologia de cada ecotip està adaptada a les pressions selectives de cada zona. Així, la forma que ocupa la zona inferior (SU) presenta una petxina petita, llisa i sense bandes, amb un peu gran que li permet suportar la forta maror. Per contra, la forma de la zona superior (RB), amb petxina gran, rugosa i amb bandes, pot resistir els canvis sobtats de salinitat, l’alta exposició solar i la depredació dels crancs, característics d’aquesta zona. Nombrosos estudis de marcatge-re-
L’espècie horitzontal 133
captura i de trasplantament a les costes de Galícia donen suport a aquesta relació entre adaptació ecològica i distribució ecotípica. Però a més, Rolán-Alvarez manté que la diferenciació s’ha produït en simpatria basant-se en dues evidències: l’origen in situ d’un aïllament reproductiu prezigòtic i l’agrupament local monofilètic de les filogènies moleculars. La selecció de microhàbitat promou aïllament ecològic, però en la zona de transició ambdós ecotips es troben, s’aparellen i produeixen híbrids. L’estudi de l’aparellament in situ a la natura demostra un 70 % d’aïllament sexual. Aquest aïllament incomplet es tradueix en una diferenciació molecular entre ecotips simpàtrics, absent entre els mateixos ecotips separats per distàncies microgeogràfiques semblants. Totes aquestes dades suggereixen que la selecció divergent d’hàbitat ha promogut un aparellament preferencial per la grandària. Malgrat tot, el patró geogràfic actual de variació genètica no permet distingir entre un escenari passat al·lopàtric o un de simpàtric. Però, sortosament, les filogènies moleculars de quatre poblacions aïllades de la costa gallega agrupen els dos ecotips (RB i SU) de cada localitat (vegeu la figura), un resultat totalment incompatible amb un model al·lopàtric seguit de contacte secundari. En resum, tal i com Quesada et al. (2007) exposen: «La distribució simpàtrica dels ecotips RB i SU, l’elevat flux gènic entre ecotips, l’evidència d’aïllament reproductiu, la monofília dins de regions i el rebuig d’un escenari al·lopàtric, satisfan tots els criteris que calen per deduir un origen simpàtric múltiple d’ambdós ecotips (Coyne i Orr, 2004)». a 1,00
0,98
b
Arealonga
1,00 Roncudo
Galícia
0,98 0,90
Ons
1,00
1,00
0,96 Cies
RB SU Arealonga Roncudo Ons Cies
1,00
L. fabalis 0,005 substitucions/lloc
L. obtusata
134 A. Fontdevila
d’ençà d’això ara s’han originat in situ unes cinc-centes espècies a partir probablement d’una única espècie fundadora. Aquesta explosió s’ha repetit en altres llacs i s’han format grans grups d’espècies estretament relacionades, anomenades eixams d’espècies. Els estudis pluridisciplinaris d’aquest escenari demostren que les causes són probablement una combinació de successos que Crataegus
s’inicien amb una invasió fundadora, gairebé segurament d’un sol individu, seguida per períodes d’aïllament i contacte de les conques lacustres a causa dels canvis del nivell de l’aigua pels moviments tectònics. Aquests episodis generen divergència per deriva genètica fundadora, selecció d’hàbitat i selecció sexual. Les diferències extremes en l’alimentació i en els colors dels
Malus Rhagoletis mexicana
’
’
EUA ’
Figura 1. Una representació de la hipòtesi introgressiva del complex Rhagoletis (Feder, 2005). El primer succés d’aïllament, fa uns 1,5 milions d’anys (ma) a Mèxic, genera una divergència d’al·lels i d’inversions cromosòmiques entre els llinatges del nord (N, EUA) i de l’Altiplano de Mèxic (M). Posteriorment, fa entre 0,5 i 1 milió d’anys, es produeix un (o més d’un) contacte secundari en el qual hi ha introgressió d’al·lels i inversions del llinatge M, les quals formen clines latitudinals. Els al·lels associats a inversions devien determinar els períodes de diapausa, i la seva disposició clinal hauria afavorit l’adaptació als períodes de fructificació, depenent de la latitud, de les espècies hostes. Més tard, fa uns 250.000 anys, probablement es devien produir nous episodis de flux gènic però sense introgressió d’inversions. Finalment, fa cent cinquanta anys, la raça de Crataegus (arç blanc) salta d’hoste a les pomeres (Malus). Les línies primes delimiten les poblacions. Les gruixudes representen els arbres gènics dels al·lels segregants dins de les poblacions: línia grisa: al·lels mexicans; línia negra: al·lels del nord (N, EUA); línia de punts: al·lels del nord procedents d’introgressió d’al·lels del sud (NS). El gruix és proporcional a la freqüència al·lèlica. Així, l’amplada dels al·lels NS en la raça Malus indica una major freqüència respecte als al·lels N (modificat de Feder, 2003).
L’espècie horitzontal 135
cíclids donen suport al fet que la selecció d’hàbitat i la selecció diversificadora han contribuït molt eficaçment a la selecció en simpatria. Però la complexitat d’hàbitat i de la història geològica no descarta la presència de barreres i fa difícil descartar episodis intercalats d’especiació al·lopàtrica. Afortunadament, alguns estudis de cíclids en petits llacs de cràters volcànics de Nicaragua tenen molta menys complexitat històrica i biogeogràfica, la qual cosa ha permès demostrar que la selecció ecològica relacionada amb l’hàbitat tròfic és la força determinant de l’especiació en simpatria (Barluenga et al., 2006). Malgrat les dificultats de reconstruir la història de l’especiació en simpatria, els estudis anteriors, i també d’altres (vegeu Dieckman et al., 2004, per a un recull d’estudis d’especiació adaptativa), permeten extreure algunes conclusions importants. En primer lloc, és clar que l’especiació simpàtrica sembla ben fonamentada, almenys quan hi ha adaptació d’hoste, i ben establerta en alguns grups taxonòmics com els insectes monòfags i alguns altres. En segon terme, els estudis de marcadors de DNA i els enfocaments filogenètics i filogeogràfics demostren en els estudis més aprofundits que l’especiació és sovint el resultat intercalat d’episodis simpàtrics i al·lopàtrics. Mal let (2005a) ha resumit aquesta idea dient que «actualment la teoria i les proves empíriques donen molt suport a una visió més plural del model geogràfic de l’especiació, i definitivament un que pot ocórrer fàcilment sense l’exclusivitat de l’al·lopatria». En definitiva, encara que les barreres geogràfiques tenen un paper en l’especiació, fins i tot en molts casos en què la simpatria està ben fonamentada, és molt discutible el paper bàsic de l’al·lopatria com a mecanisme determinant únic de la divergència adaptativa. I el que és més important, l’argument simpàtric ha desafiat el paper secundari de
la selecció natural en els episodis inicials de l’origen de les espècies, segons proposa Mayr (1970), la qual cosa ens porta envers una visió darwinista més plural de l’especiació i a una apreciació del paper de la selecció natural. EL PODER CREATIU DE L’INTERCANVI HÍBRID Els botànics han estat els més reticents a acceptar el CBE des dels inicis de la seva definició. La raó d’aquest escepticisme és, sens dubte, la freqüència amb què s’observa la capacitat d’hibridació en el món de les plantes. Fins i tot alguns botànics defensors del CBE, com Grant (1957), no s’amaguen d’haver d’acceptar que un alt percentatge de «bones» espècies vegetals al·lògames no es poden definir mitjançant criteris d’aïllament reproductiu. Tot sovint les espècies vegetals coexisteixen en unitats naturals, anomenades singàmeons, amb un alt grau d’hibridació entre aquestes. Alguns autors com Grant (1981), que s’adhereixen al criteri de l’aïllament reproductiu, tracten de «resoldre» el problema assignant al singàmeon el rang d’espècie i als seus tàxons la categoria de semiespècies. No cal dir que aquesta solució és elusiva i no satisfà la major part dels taxònoms, els quals veuen els membres dels singàmeons com vertaderes espècies amb la necessària estabilitat espaciotemporal en els seus caràcters morfològics, ecològics i genètics. Aquesta estabilitat es manté moltes vegades durant llargs períodes geològics, com en el cas de les espècies del gènere Populus, les quals han estat hibridant des de fa més de dotze milions d’anys sense perdre la seva identitat (Eckenwalder, 1984). Encara que la hibridació en plantes ha estat tradicionalment més documentada que en animals, les dades recents amb marca-
136 A. Fontdevila
dors moleculars indiquen que la hibridació animal no és una raresa. És més, a mesura que anem sondejant els genomes amb marcadors de locus múltiples, el nombre de casos d’introgressió interespecífica va augmentant. Una revisió recent (Mallet, 2005b) conclou que almenys el 25 % de les espècies vegetals i un 10 % de les animals participen en hibridació i tenen capacitat per a la introgressió. Sortosament, la introgressió mitjançant hibridació o altres tipus d’intercanvi genètic, dels quals parlem més endavant, pot posar-se a prova avui dia (vegeu Arnold, 2006, cap. 3, per a una revisió), la qual cosa ha permès posar en evidència molts casos de difícil detecció anteriorment. Una objecció molt comuna al valor evolutiu de l’abundància de la hibridació és que la taxa d’hibridació per individu és baixa i mai no acaba produint introgressió. Però encara que la hibridació sigui rara, està comprovat que, almenys en alguns grups com els insectes i les aus, i per descomptat en les plantes, una vegada s’ha produït un híbrid aquest es pot retroencreuar amb un individu parental amb facilitat si no és completament estèril. Malauradament, els híbrids per retroencreuament són molt més difícils de detectar i tradicionalment això ha estat una de les causes que ha impedit avaluar la importància del flux gènic fins que els marcadors de DNA han estat a l’abast. Una altra dificultat per estimar les taxes d’introgressió per hibridació és el fet que la presència d’al·lels comuns en dues espècies pot ser també el resultat d’almenys dos altres processos: la transferència lateral o horitzontal i els polimorfismes ancestrals. La transferència lateral consisteix en el fet que els gens poden passar d’una espècie a una altra mitjançant mecanismes diferents de la hibridació, com la transposició i la transducció. Aquests mecanismes, en els quals participen en molts casos els elements transposables, i que encara són bas-
tant desconeguts, permeten que hi hagi intercanvi genètic horitzontal i són una font molt important d’evolució en els procariotes (i possiblement en els eucariotes). Al llarg d’aquest capítol tractaré de donar una visió resumida i actualitzada d’aquest important procés. Els polimorfismes ancestrals poden repartir aleatòriament els al·lels d’un gen en les diferents poblacions divergents en el procés d’especiació i al llarg de successives ramificacions. Els al·lels d’un polimorfisme han anat apareixent per substitucions nucleotídiques i tenen diferents graus de divergència entre si. Si dos al·lels semblants, perquè han divergit fa poc temps, van a parar cadascun a dues poblacions diferents que originen dues espècies, es podria pensar erròniament que el gen és un gen introgressat (vegeu la figura 2). Cal assenyalar que l’arbre filogenètic que s’assoleix utilitzant marcadors gènics és un arbre de gens i no d’espècies, els quals no coincideixen sempre, com en el cas d’un polimorfisme ancestral. És interessant veure que les conclusions a què arriben els investigadors per donar suport o no a la introgressió per hibridació depenen de la seva formació a priori. Davant d’un cas d’al·lels compartits els zoòlegs es decanten normalment pel repartiment de llinatges d’un polimorfisme ancestral, mentre que els botànics opten per la introgressió per hibridació, tal i com puntualitza Arnold (2006, p. 34). Sense treure importància als altres mecanismes, l’evidència actual de la introgressió per hibridació és molt àmplia en molts casos descrits de la naturalesa. Segons Mal let (2005b) aquests comprenen no solament les plantes (el 25 % de les plantes superiors), sinó també molts animals, com les papallones (Rhopalocera: 12 %; Papilionidae: 14-32 %; Heliconiinae: 26 %) i les aus (Anatinae: 76 %; Paradisaeidae: 43 %; Paridae: 29 %). Fins i tot els mamífers sembla que s’hibriden amb una freqüència significati-
L’espècie horitzontal 137
va (6 %). Totes aquestes noves dades desafien el punt de vista clàssic que el flux gènic és negligible en la natura i a poc a poc es va acceptant que les espècies poden mantenir la seva cohesió enfront d’un cert grau d’introgressió. Divergència amb flux gènic Hi ha molts exemples de divergència amb flux gènic, però, paradoxalment, un dels ca-
1
A
2
1 2 5
3
sos més documentats fa referència a espècies de Drosophila, les mateixes espècies que van servir a Dobzhansky i els seus col· laboradors per defensar les barreres d’aïllament. Powell (1983), un antic deixeble de Dobzhansky, en un estudi pioner amb DNA mitocondrial, va detectar un important flux gènic entre poblacions simpàtriques de D. pseudoobscura i la seva espècie germana D. persimilis, encara que uns anys després va interpretar els resultats com un exemple de repartiment del polimorfisme ancestral.
Espècie X
1 5
X
Espècie Y
2
Y
Espècie Z
Z
4
B 5 3 4 6
6
3 4 6
Espècie ancestral
Arbre d’espècies
5 X
2 Y
1 X
2 Y
5 X
2 Y
3 Z
4 Z
4 Z
Arbres de gens
Figura 2. El problema dels arbres gènics per definir l’evolució de les espècies quan hi ha un repartiment aleatori del polimorfisme gènic ancestral. La figura il·lustra un cas en què l’espècie ancestral és polimòrfica per a sis al·lels (1-6) del gen en estudi, la filogènia dels quals es mostra. En un primer succés de divergència es reparteixen els al·lels en dues poblacions que generen dues espècies noves (A i B). En una etapa posterior l’espècie A se subdivideix en dues noves poblacions, que esdevenen dues espècies (X i Y) amb un nou repartiment d’al·lels. L’espècie B esdevé l’espècie Z, en aquest cas sense subdivisió. Segons els al·lels que utilitzem, ja sigui perquè els altres s’han extingit o per qüestions de mostreig, la reconstrucció filogenètica diferirà o no de la vertadera filogènia d’espècies. Per exemple, si utilitzem els al·lels 5, 2 i 3 la filogènia agruparà les espècies Y i Z com a més properes. Però si utilitzem els al·lels 5, 2 i 4, les espècies més properes seran la X i la Z. La filogènia real de les espècies, en què X i Y són les més properes, apareixerà només si utilitzem, per exemple, els al·lels 1, 2 i 4. Cal observar que si hi ha hagut transferència horitzontal entre les espècies X i Z o Y i Z el resultat de les filogènies errònies seria el mateix.
138 A. Fontdevila
Recentment, Hey i el seu equip, amb un conjunt de gens nuclears i mitocondrials, han aportat proves contundents d’introgressió entre ambdues espècies. Aquests estudis no solament han demostrat signatures d’introgressió, sinó que diferents gens mostren graus d’introgressió diferents (Wang et al., 1997), que van des d’un abundant flux recent per al locus Adh, passant per un flux limitat i antic per al locus per, fins a una manca de flux per al locus Hsp82. Aquest aparent enrenou ha estat resolt quan els estudis de lligament en els genomes han demostrat que certes regions genòmiques, generalment associades a gens sotmesos a selecció divergent, contenen locus molt diferenciats entre les espècies, mentre que altres regions sense adaptacions divergents estan molt introgressades i són poc divergents. En alguns casos les adaptacions divergents estan lligades a inversions cromosòmiques (Noor et al., 2001). Ja que les inversions inhibeixen la recombinació, aquesta associació suggereix que les inversions ajuden a mantenir plegades les divergències adaptatives de cada espècie enfront del paper disgregatiu de la recombinació. El mateix efecte sobre l’especiació ha estat suggerit en la divergència humans-ximpanzés, en què la taxa de substitució aminoacídica és més alta en els cromosomes amb reordenacions (Navarro i Barton, 2003). Aquests i altres estudis de l’arquitectura del genoma demostren que la hibridació és un procés en marxa, que genera flux gènic d’una manera desigual pel paisatge genòmic, amb una major intensitat en aquelles regions menys implicades en els caràcters adaptatius que incideixen en l’aptitud reproductiva, ecològica i etològica. Per tant, podríem dir que el genoma no és impermeable al flux gènic, sinó que més aviat és semipermeable, i que només aquelles regions critiques per a la integritat de l’espècie estan reproductivament aïllades. Aquesta vi-
sió reticulada de l’especiació que compatibilitza el flux gènic i la divergència adaptativa desafia novament l’exclusivitat del paper de l’aïllament reproductiu en la integritat de l’espècie. L’especiació híbrida amb duplicació de genomes El paper de la hibridació va més enllà de l’efecte que el flux gènic té en modificar l’arquitectura genòmica de les espècies, encara que se’n mantingui la integritat. Sovint la hibridació és també el punt de partida per generar noves espècies. És ben sabut que la majoria d’espècies de falgueres (pteridòfits) i de plantes fanerògames (angiospermes) s’han originat duplicant tot el genoma (poliploïdia), i que una gran part dels seus genomes és d’origen híbrid (al·lopoliploïdia). En molts casos l’esterilitat híbrida és el resultat d’una segregació cromosòmica anòmala en la meiosi deguda al mal aparellament dels cromosomes híbrids no homòlegs, la qual cosa produeix molts gàmetes deficients amb un nombre incorrecte de cromosomes. Doblar el nombre de cromosomes en els híbrids per poliploïdia proporciona un conjunt complet de cromosomes homòlegs que supera la barrera de l’esterilitat perquè cada cromosoma té una copia homòloga duplicada per aparellar-s’hi. Aquest és un mecanisme sorprenent perquè en un sol pas produeix una nova espècie al·lopoliploide, i per això s’anomena tot sovint especiació instantània. Val a dir que el procés no és tan instantani, perquè generalment ocorren moltes reorganitzacions genòmiques, tant cromosòmiques com de seqüències de DNA, immediatament després de la duplicació. Aquest dinamisme genòmic, observat en la síntesi d’al·lopoliploides artificials, té importants conseqüències per generar nova va-
L’espècie horitzontal 139
riabilitat per recombinació, molt útil per a l’adaptació ecològica a nous hàbitats i també per augmentar la fertilitat. Les causes d’aquest dinamisme es comencen a conèixer i semblen relacionades amb la inducció de la mobilització dels elements transposables. Per exemple, en al·lopoliploides experimentals d’Arabidopsis, una planta de la família de les cols (Madlung et al., 2005) i en al·lotetraploides de cotó (Gosssypium barbadensis) sintetitzats de nou (Zhao et al., 1998) alguns retroelements han augmentat la seva taxa d’expressió o transposició. McClintock (1964), basant-se en els seus treballs amb el blat de moro, va avançar la idea que «grans reestructuracions cromosòmiques poden produir-se en una planta híbrida i es poden continuar produint en la seva descendència». Aquests experiments recents sembla que donen suport a les idees de McClintock, Premi Nobel pel descobriment dels elements transposables i els seus efectes en la regulació i evolució del genoma. Però encara que l’al·lopoliploïdia és un mecanisme freqüent d’especiació, moltes espècies s’originen també per hibridació sense cap duplicació genòmica. Aquestes espècies híbrides, anomenades homoploides, superen la «inferior» fertilitat híbrida mitjançant diversos mecanismes, dels quals parlarem més endavant. Aquest procés és totalment inacceptable per als defensors del CBE, els quals consideren la baixa fertilitat híbrida com la garantia necessària per a la integritat de les espècies. Val a dir que no tots els neodarwinistes comparteixen aquest punt de vista. Stebbins i Grant, per exemple, accepten la hibridació com una font de noves espècies. Més amunt he tractat de justificar el fet de que la hibridació sembla freqüent a la natura i que aquesta genera mosaics genòmics susceptibles d’evolució ulterior. La capacitat de supervivència dels híbrids queda palesa quan observem que la mesura acurada de l’aptitud dels híbrids ens de-
mostra que sovint aquests no tenen una aptitud global inferior a les espècies parentals (vegeu la taula 1). Recentment tenim proves contundents del fet que la hibridació, mitjançant diversos mecanismes de reproducció, té un paper important en l’origen de moltes espècies, i tot això gràcies al treball experimental de molts investigadors, del qual faig un esbós a continuació. L’especiació híbrida sense duplicació (homoploide) Un paradigma de l’especiació híbrida sense duplicació genòmica és el que protagonitzen diverses espècies de gira-sols (gènere Helianthus). L’espècie H. anomalus té un origen híbrid a partir de les espècies H. annus i H. petiolaris. Quan es comparen els mapes genètics de les tres espècies s’observa una àmplia reorganització del genoma híbrid, produïda per almenys tres trencaments, tres fusions i una duplicació en els cromosomes de les espècies progenitores. Rieseberg i els seus col·laboradors han estudiat la dinàmica d’aquesta reestructuració mitjançant encreuaments híbrids en el laboratori. Després de només cinc generacions d’hibridacions i retroencreuaments van recuperar diverses línies híbrides fèrtils, i van comprovar que els cromosomes híbrids s’havien reorganitzat i que l’ordre dels gens era molt semblant en totes les línies híbrides obtingudes. I el que és més sorprenent, aquesta estructura genòmica dels híbrids artificials era concordant amb la de l’espècie híbrida natural, H. anomalus (vegeu la figura 3). Aquestes concordances genòmiques, juntament amb el ràpid augment de la fertilitat de les línies sintètiques en només cinc generacions, van suggerir als investigadors que la selecció per la fertilitat híbrida és ràpida i depèn de blocs específics de gens (Rieseberg et al., 1996).
140 A. Fontdevila Taula 1. Aptitud híbrida en alguns gèneres que hibriden a la natura Gènere Plantes Quercus Artemisia Iris Eucalyptus Carpobrotus Animals Hyla Sceloporus Colaptes Geospiza Allonemobius Mercenaria Notropis Bombina Apis Gasterosteus Gambusia
Component de l’aptitud híbrida
Aptitud híbrida relativa
Maduració del fruit Estabilitat del desenvolupament, herbivoria Tolerància a l’ombra Viabilitat de les llavors madures Valor reproductiu Reclutament (llavors per planta) Germinació de les llavors (després del pas intestinal)
L-E E I (I-H) E, L I (I-H), L I H
Estabilitat del desenvolupament Segregació cromosòmica en els mascles Grandària de la niuada Supervivència, reclutament, èxit reproductiu Supervivència Supervivència Supervivència Viabilitat Capacitat metabòlica Eficiència alimentària (farratgera) Desenvolupament
E E (E-L) E H I(L-I) L, E(E-H) L (L-E) L, E L I H, I
Adaptat d’Arnold (1997), on es poden trobar totes les referències originals, excepte per a Carpobrotus (Vilà et al., 2000). Les estimes d’aptitud són relatives a ambdues espècies parentals: L: aptitud inferior; I: intermèdia; E: equivalent; H: superior. Es dóna l’aptitud més comuna seguida de l’interval dels valors d’aptitud entre parèntesi. Les comes separen els resultats de diferents estudis (Fontdevila, 2004).
Però la selecció per fertilitat no ha estat l’única en el procés d’especiació dels girasols. Gross i Rieseberg (2005) han puntualitzat que la selecció ecològica ha tingut també un paper molt important. Almenys hi ha tres espècies híbrides (H. anomalus, H. deserticola i H. paradoxus) que ocupen hàbitats molt divergents dels de les espècies progenitores, les quals utilitzen des de sòls d’argiles pesades i humides (H. annuus) fins a sòls sorrencs i àrids (H. petiolaris). Aquestes dues espècies formen eixams híbrids que, mitjançant hibridacions repetides, s’estabilitzen i possibiliten l’evolució dels híbrids per adaptació ecològica cap a hàbitats nous no ocupats, que moltes vegades són més extrems (transgressius) que els de les espècies progenitores. Així, H. anomalus és endèmic
de les dunes actives, H. deserticola es troba en hàbitats xèrics i H. paradoxus ocupa els aiguamolls salins desèrtics, tots ambients extrems. Hi ha molts casos semblants de divergència ecològica en altres espècies híbrides homoploides en plantes (gèneres Stephanomeria, Paeonia, Argyranthemum, Penstemon, Senecio, Pinus i Iris). Però l’evidència de divergència ecològica no és una prova final del fet que és realment la hibridació la responsable de l’aparició dels caràcters seleccionats. Podria ser que aquests caràcters adaptatius fossin el resultat de l’acció gradual de mutacions acumulades després de l’especiació. Novament la capacitat de portar a terme experiments tant en hivernacles com en condicions naturals amb
L’espècie horitzontal 141
225 135
296
261
A4
R
487
215
tr1 254
D4
T
226 199
Q
B6
313 443 227
rp1
nf73
Híbrids H. anomalus sintètics 239
Híbrids sintètics
103
295
H. anomalus
Marcadors o blocs de lligament d’H. petiolaris
A15 Marcadors o blocs de lligament d’H. anuus
40 cM 471
Híbrids sintètics
H. anomalus
Figura 3. Composició genòmica concordant entre llinatges híbrids antics i experimentals (sintetitzats) per a tres grups de lligament (cromosomes). Les lletres a l’esquerra de cada grup assenyalen blocs de lligament de l’espècie híbrida Helianthus anomalus i indiquen homologia amb blocs de les espècies parentals, H. annuus i H. petiolaris. La distribució dels blocs cromosòmics parentals en els híbrids sintètics (grup de l’esquerra) i en l’espècie híbrida natural H. anomalus (grup de la dreta), que s’indica mitjançant barres grises (H. petiolaris) o negres (H. annus), és molt concordant. Les regions que contenen zones intercalades d’ambdues espècies parentals s’indiquen amb diferents intensitats de grisos (Rieseberg i Noyes, 1998).
142 A. Fontdevila
Helianthus ha permès reproduir en els híbrids sintètics els mateixos caràcters extrems que es troben en les espècies híbrides antigues. Aquests caràcters inclouen el contingut de nitrogen i la suculència de les fulles i l’àrea foliar en H. anomalus, el diàmetre de la tija i l‘època de floració en H. deserticola i el contingut de sofre, calci i bor, la forma i la suculència de les fulles en H. paradoxus. Aquest treball s’ha completat amb estudis genètics que demostren que els caràcters extrems (transgressius) dels híbrids es poden generar mitjançant l’acció complementària dels gens dels progenitors (Rieseberg et al., 2003). Aquests resultats constitueixen un cos formidable de proves que dóna suport al paper principal de la selecció ecològica en l’origen de les espècies híbrides homoploides. Encara que la majoria d’estudis aprofundits de la genètica i l’ecologia de l’especiació híbrida han estat fets amb plantes, a mesura que hem anat disposant de noves sondes genòmiques els animals també han contribuït amb alguns exemples ben documentats (vegeu Arnold, 1997). La família dels peixos ciprínids (Cyprinidae) mostra una taxa d’hibridació natural relativament alta (11-17 %). Està demostrat que l’espècie Gila seminuda es va originar per hibridació entre G. elegans i G. robusta. En realitat, actualment es considera que tot el gènere Gila ha evolucionat segons processos d’hibridació (Dowling i DeMarais, 1993) que han intercanviat gens entre espècies (reticulació), i que aquesta introgressió sembla que continua actualment, en vista de l’extrema semblança del DNA mitocondrial entre algunes espècies de Gila. El paper de la divergència ecològica ha estat també demostrada en G. seminuda per l’observació de la seva distribució restringida al riu Virgin, un petit afluent del riu Colorado al sudoest dels EUA. En aquest afluent les espècies progenitores de G. seminuda no s’han
trobat mai, malgrat que coexisteixen simpàtricament en tot el riu Colorado i no sembla que hi hagi cap barrera que n’impedeixi la migració. Les revisions recents de l’especiació homoploide en animals (vegeu una revisió a Arnold, 2006, p. 144-147) descriuen un nombre de casos cada vegada més ampli, alguns dels quals molt comprovats, que inclouen organismes tan diversos com les puces d’aigua (Daphnia), els coralls (Alcyonium), les llagostes (Warramaba), les granotes (Rana), les mosques (Rhagolethis) i les mones (Macaca). Molt probablement aquesta llista ha d’augmentar a mesura que s’utilitzin més mètodes moleculars i nous enfocaments sobre l’especiació híbrida en els projectes d’investigació futurs. Un trànsit horitzontal de gens L’intercanvi de gens entre espècies no es limita a la hibridació. La transferència de gens d’un organisme a un altre que no sigui un descendent seu, anomenada transferència horitzontal (o lateral) de gens (THG), és avui dia totalment acceptada en els procariotes i cada vegada més evident en els eucariotes. L’any 1959 un grup de científics japonesos va comunicar per primera vegada que els gens de resistència a antibiòtics podien passar horitzontalment d’un bacteri a un altre. La sorpresa, carregada d’escepticisme, va ser tan gran que la comunitat científica occidental va necessitar una dècada per creure-s’ho. Aquest fet no ens ha de sorprendre si tenim en compte que la THG està en contra del principi filogenètic de la transmissió vertical i, sobretot, del paper exclusiu de la interrupció del flux gènic en la integritat de les espècies. L’impacte es va fer palès quan els mètodes genòmics van revelar que una gran part del genoma bacterià és d’origen aliè; en el cas del conegut Escherichia coli, fins a un 18 % (Lawrence i Ocham, 1998).
L’espècie horitzontal 143
L’escepticisme sobre el valor evolutiu de la THG ha continuat fins que en l’última dècada una allau de dades genòmiques han demostrat sense cap dubte que la THG té un paper important no solament en els procariotes sinó també en els eucariotes. El món quimèric dels virus i els procariotes Enlloc és tan espectacular el poder de l’intercanvi horitzontal com en els virus. Els virus dels bacteris, anomenats bacteriòfags, són uns intermediaris molt eficaços per transmetre factors genètics als bacteris mitjançant un procés anomenat transducció. Molts d’aquests factors permeten adquirir noves funcions als bacteris i contribueixen significativament a la seva evolució. La transducció no és l’únic procés de TGH en els bacteris. La transformació i la conjugació són dos mecanismes que permeten transferir material genètic d’un bacteri a un altre mitjançant els plasmidis i altres elements genètics mòbils. Tanmateix, no tots els gens són transferits amb la mateixa freqüència. Mentre que els gens que codifiquen funcions cel·lulars molt generals (domèstiques), com les proteïnes histones o ribosòmiques, són àmpliament transferits, els gens informatius com els que intervenen en la transcripció o la traducció són transferits amb menys freqüència. La raó ha estat atribuïda al fet que la complexitat de les interaccions dels gens informatius limita la transferència horitzontal amb èxit. Però, independentment de si aquesta «hipòtesi de la complexitat» (Jain et al., 1999) és o no certa, el poder i la persistència de la THG han fet trontollar els conceptes d’organisme i espècie. Alguns evolucionistes (Goldenfeld i Woese, 2007) veuen els bacteris com a comunitats naturals, en comptes d’individus, ca-
paces d’envair nínxols ecològics a causa del seu poder d’adquirir i descartar gens en resposta a l’ambient. Això, segons Woese, fa dubtar de la validesa del concepte d’espècie en el regne microbià. Sigui com sigui, ningú avui no gosa negar que la transferència horitzontal ha estat fonamental en l’evolució dels procariotes. Hi ha trànsit de gens en el món eucariota? La integració de seqüències víriques en els genomes eucariotes està molt ben caracteritzada. Aquest dinamisme està promogut en gran part pels elements transposables i permet especular sobre la interacció entre el DNA genòmic i el món exterior (Leitch, 2007). Recentment, han estat descrits exemples de transferència horitzontal de seqüències víriques en els eucariotes. Un dels millors documentats és el DNA del geminivirus, que s’ha trobat integrat en forma de repeticions en tàndem en el genoma d’espècies de Nicotiana. En aquest cas és molt possible que l’element mòbil Helitron hagi capturat el virus i hagi cooperat en la integració i l’amplificació d’una seqüència recombinant (Murad et al., 2004). Altres casos semblants han estat descrits en seqüències de pararetrovirus integrades en els plataners, el tabac i la petúnia. Un cas recent molt espectacular fa referència a la integració d’un retrovirus en el genoma del coala (Tarlington et al., 2006). Molts evolucionistes pensen que aquest cas d’endogenització retrovírica no és un succés aïllat, i que aquest fenomen ha estat tan freqüent en la història evolutiva que possiblement una tercera part del nostre genoma és d’origen víric. Les proves que els genomes eucariotes molt probablement poden integrar també gens d’origen procariota (i possiblement eucariota), almenys en els eucariotes
144 A. Fontdevila
fagotròfics unicel·lulars, s’estan acumulant acceleradament (Andersson 2005). Entre aquests tenim actualment molts casos que inclouen Giardia, Trypanosoma, Entamoeba, Euglena, Cryptosporidium i altres (vegeu les referències a Huang et al., 2004). Molts gens adquirits per THG són d’origen mitocondrial o aporten funcions mitocondrials. Però fins fa ben poc la transferència entre bacteris i organismes multicel·lulars era considerada rara o, almenys, inexistent. Recentment un estudi de genomes complets realitzat per set grups de recerca (Dunning Hotopp et al., 2007) ha demostrat que els genomes d’insectes i nematodes contenen una àmplia gama d’insercions del bacteri endosimbiont Wolwachia pipiens, que van des de petites seqüències de menys d’1 Mb fins a gairebé el genoma complet. Segons els autors, la raó de no haver detectat abans aquest tipus de THG és que «les seqüències bacterianes han estat rutinàriament excloses dels mètodes d’acoblament bioinformàtic sense una verificació experimental». Les proves de gens de transmissió horitzontal entre eucariotes multicel·lulars són menys abundants. Les plantes proporcionen alguns exemples ben documentats. En aquesta dècada Palmer i el seu equip (Bergthorsson et al., 2003) han donat dades molt sòlides del fet que les discordances filogenètiques amb gens mitocondrials trobades en les angiospermes són molt probablement degudes a TGH entre plantes allunyades evolutivament. Si deixem de banda els casos ja coneguts de TGH en eucariotes mitjançant els elements transposables, aquest ha estat el primer cas fonamentat del fet que les plantes poden transferir DNA a d’altres plantes. Des d’aleshores els casos de transferència horitzontal de DNA mitocondrial han anat augmentant. Entre els exemples més il·lustratius hi ha els que impliquen les plantes hostes i les seves plantes paràsites perquè ens
aporten proves que la TGH es pot produir pel contacte físic directe. Moltes plantes del gènere Plantago, una mala herba, estan parasitades per plantes deficients en clorofil·la del gènere Cuscuta. L’equip de Palmer (Mower et al., 2004) ha construït una filogènia amb quaranta-tres espècies de Plantago basant-se en el gen mitocondrial atp1. Aquesta filogènia està d’acord en general amb altres filogènies, però tres espècies de Plantago contenen un pseudogèn atp1 que s’agrupa amb el del gènere Cuscuta, molt allunyat filogenèticament, la qual cosa dóna suport a la TGH des del paràsit a l’hoste. Resulta molt significatiu que altres dues espècies de Plantago pròximes entre si i que creixen exclusivament a gran altitud als Andes continguin també un altre pseudogèn atp1, que s’agrupa en el clade de les Orobanchaceae, una família que comprèn plantes paràsites. En particular, aquest pseudogèn és molt semblant al de les plantes paràsites del gènere Bartsia, endèmiques dels Andes d’altitud, mentre que el pseudogèn atp1 dels Plantago europeus s’agrupa només amb els gens de la Cuscuta europea. Aquesta correspondència biogeogràfica dóna encara més suport al fet que la transferència no solament és horitzontal, sinó que es realitza per contacte directe entre paràsit i hoste, possiblement mitjançant els haustoris, unes estructures especialitzades dels paràsits que penetren intracel· lularment dins dels seus hostes. Hi ha milers de plantes paràsites i recentment molts altres casos de THH han estat demostrats en els gèneres paràsits Rafflesia i Sapria, que han adquirit seqüències de DNA mitocondrial a partir de les seves plantes hostes (Davis i Wurdack, 2004). LA XARXA DE LA VIDA Fins ara he tractat d’il·lustrar que el ge-
L’espècie horitzontal 145
noma és probablement un mosaic de seqüències de DNA producte de la transmissió vertical, de la hibridació i, també, de la transmissió horitzontal. Aquesta visió nova planteja alguns problemes per explicar la integritat de les espècies i, en conseqüència, la seva definició. El tema no és trivial perquè incideix no solament en les bases epistemològiques de l’especiació, el misteri dels misteris darwinista, sinó també en gran part de la «llarga» discussió darwinista de l’evolució. En aquesta part final del capítol tractaré d’aclarir el que jo considero el punt de vista més adequat de l’espècie i com aquest es relaciona amb les idees de Darwin. En resum, la qüestió a tractar és si les noves proves de la genètica i la genòmica evolutives donen suport, modifiquen o contradiuen les bases del paradigma darwinista. Tota la llarga discussió (the long argument) continguda en L’origen de les espècies, tal com hem vist al principi del capítol, condueix a l’afirmació de Darwin que l’evolució és un procés de descendència amb modificació. La representació d’aquest procés en forma d’arbre és una de les conclusions immediates que Darwin presenta en la seva obra, però no és l’única. Val a dir un cop més que aquesta il·lustració magistral de la ramificació dels llinatges evolutius representa una garrotada definitiva al punt de vista creacionista de la vida, la scala naturae, en la qual tots els organismes estan arrenglerats en una escala, en ordre creixent de complexitat, fixada des del moment de la creació independent. Avui sabem que això no és així i que els organismes són el resultat d’una evolució ramificada. Una altra conclusió del punt de vista darwinista fa referència al concepte d’espècie. La reticència de Darwin a acceptar una definició precisa d’espècie es fa palesa al llarg de la seva obra, sobretot en el valor dubtós que dóna a l’aïllament reproductiu com a
criteri de definició d’espècie. Darwin va defensar sempre que «ni la fertilitat ni l’esterilitat permeten una distinció clara entre espècies i varietats» i proposa que «les proves a partir d’aquest origen es van fent graduals i són dubtoses en la mateixa mesura que les altres proves derivades d’altres diferències constitutives i estructurals» (Darwin, 1859, p. 248). En altres paraules, Darwin no veu cap diferència fonamental en la naturalesa gradual dels caràcters definitoris de les espècies, com són la morfologia, la fisiologia o el comportament, i les barreres d’aïllament reproductiu. Abans ja he explicat com Darwin reivindica el paper de la selecció natural enfront de les barreres d’aïllament, la qual cosa afavoreix els models no al·lopàtrics d’especiació. Ara, després d’haver documentat la presència d’intercanvi genètic en tots els dominis de la vida, la selecció natural reforça el seu protagonisme en l’origen i el manteniment de les espècies. No és estrany, per tant, que veient els problemes del CBE, molts evolucionistes hagin proposat conceptes d’espècie independents de criteris reproductius. L’espècie cohesiva Els conceptes d’espècie es fonamenten en propietats universals (o simplement «universals») dels membres de cada espècie. Per exemple, el concepte filogenètic es basa en la seva pertinença a un llinatge evolutiu; el concepte biològic, en la comunitat reproductiva de la qual formen part; el concepte ecològic, en la comunitat de nínxol, etc. Aïlladament, cadascuna d’aquestes propietats universals són insuficients per a una definició d’espècie. La definició d’espècie biològica no és aplicable quan hi ha flux gènic ni tampoc serveix per als organismes asexuals. La definició filogenètica no defineix quins són els trets clau que han de consi-
146 A. Fontdevila
derar-se en les filogènies per definir l’espècie. L’espècie ecològica oblida el paper del llinatge evolutiu. Templeton (1989), en un intent integrador, ha definit l’espècie cohesiva. L’espècie cohesiva és «el grup d’organismes més inclusiu que té el potencial de l’intercanvi genètic o demogràfic», en paraules de Templeton. Per grup inclusiu entén que pertanyin a un llinatge evolutiu, amb la qual cosa inclou l’universal filogenètic. Però això no és suficient; en realitat la filogènia és un patró resultant d’un procés i no ens diu gaire dels mecanismes en joc. A més a més, l’espècie ha de ser una comunitat reproductiva amb intercanvi genètic, encara que aquí el concepte de comunitat reproductiva no es limita als encreuaments sexuals: també inclou altres mètodes de reproducció (com la transmissió materna del DNA mitocondrial). Però la reproducció requereix també que els individus ocupin un ambient en el qual estiguin adaptats (el seu nínxol) i en el qual tots siguin intercanviables (és l’intercanvi demogràfic). D’aquesta manera, una comunitat reproductiva té al mateix temps dos components, un de genètic i un d’ecològic, quelcom que no es preveu en el CBE. En resum, la demostració que un conjunt d’organismes (o poblacions) constitueix un llinatge evolutiu és necessari però no suficient per definir una espècie. El concepte cohesiu demanda que hi hagi intercanvi genètic o intercanvi demogràfic dins del grup d’organismes (i no amb altres grups externs). En els organismes sexuals l’intercanvi genètic és molt prevalent, però en els organismes asexuals és l’intercanvi demogràfic el que mana. En tot cas, la prevalença d’un o l’altre depèn del sistema de reproducció. En el domini dels organismes sexuals l’intercanvi genètic domina sobre el demogràfic, però en el dels organismes asexuals és l’inrevés. En el cas de les espècies
amb flux gènic interespecífic (singàmeons), ambdós tipus d’intercanvi tenen un paper important. Aquest concepte d’espècie té molts avantatges. El primer és que es pot aplicar a tots els éssers vius, independentment del tipus de reproducció. En segon lloc, incorpora els diferents conceptes: filogenètic, genètic i ecològic, principalment, i dóna un paper important a la selecció ecològica, absent en el CBE. Com a conseqüència, una espècie cohesiva pot intercanviar gens amb altres espècies (llinatges), però també pot mantenir el seu estatus si l’intercanvi demogràfic és únicament entre els membres del seu llinatge, propiciat per una forta selecció ecològica. Finalment, Templeton (1998) demostra que aquest concepte d’espècie és tractable quantitativament mitjançant tècniques estadístiques que permeten distingir si un conjunt d’organismes constitueixen més d’una espècie. Misteri, quin misteri? Quan es té present el paper conjunt de l’ecologia i el flux gènic sota el concepte cohesiu, la representació reticulada dels arbres d’espècies, tan freqüent en les filogènies de gens, esdevé molt menys conflictiva per entendre l’arbre de la vida. Sota aquest model els llinatges d’espècies poden mantenir la seva integritat enfront de l’intercanvi genètic interespecífic; n’hi ha prou que l’intercanvi demogràfic sigui suficient. És més, la hibridació ja no és un problema; pot fins i tot ser una nova font de variabilitat sobre la qual actuï la selecció natural. Ni tampoc no ho és la transferència horitzontal. La principal diferència entre els conceptes cohesiu i biològic fa referència al paper de la selecció natural en l’especiació. Encara que Mayr (1970) reconeix que cada espècie ocupa un nínxol diferenciat, la qual co-
L’espècie horitzontal 147
sa dóna suport a la radiació adaptativa i al «progrés» evolutiu, defensa que la selecció natural no té un paper directe en l’especiació. El seu significat està limitat a conservar la integritat de l’espècie mitjançant mecanismes subsidiaris d’aïllament. Aquest punt de vista condueix forçosament a negar l’especiació en simpatria, com ja he discutit més amunt. Per a Dobzhansky (1937), el paper de la selecció natural és important només en el reforçament de l’aïllament prezigòtic. Però, independentment de la seva importància (vegeu el requadre 1), el reforçament no dóna un paper clau a la selecció natural en l’especiació. El punt de vista de Darwin sobre el paper de la selecció natural en l’especiació és totalment diferent. No és cert, com molts autors han assegurat, que Darwin hagués deixat sense resoldre, o almenys sense encarar, el tema de l’especiació. El capítol iv de L’origen de les espècies, dedicat a la selecció natural, és un compendi d’idees sobre com es poden originar les espècies, això sí, amb un paper primordial per a la selecció natural. De fet, tot el seu llibre està farcit de paràgrafs en els quals es discuteixen les condicions favorables per a la producció de noves formes per selecció natural. Darwin discuteix el valor relatiu de l’ecologia i l’aïllament, però no es cansa de vindicar l’acció bàsica de la selecció natural, encara que reconeix la importància de l’aïllament per accelerar la divergència. Però que l’aïllament no és per a Darwin una condició necessària per a la divergència queda ben palès quan diu: «El resultat (és a dir, la divergència) tot sovint es retarda molt a causa del lliure intercanvi. Molts exclamaran que aquestes causes diverses són totalment suficients per neutralitzar el poder de la selecció natural. Jo no ho crec. El que sí que crec és que la selecció natural actua en gener-
al molt lentament, només en llargs intervals de temps i només en uns pocs habitants de la mateixa regió» (Sisena edició de The origin, p. 84-85.) Darwin no ignora l’intercanvi, un sinònim darwinista de flux gènic, com a força que s’oposa a la divergència, però mai no considera la seva interrupció una condició necessària per a l’especiació. És la selecció natural la que, enfront d’altres forces oposades a la divergència, principalment el flux gènic, dirigeix l’origen i el manteniment de les espècies. Encara que Darwin coneixia el paper de la hibridació, no podia preveure la importància que està adquirint l’intercanvi genètic arran dels estudis genòmics, tal i com hem presentat molt breument en aquest capítol. Estic convençut que si Darwin hagués conegut aquests estudis no hauria tingut cap inconvenient per substituir el seu arbre de la vida per una xarxa que representés la diversitat biològica. Aquesta xarxa de la vida no exclou la idea pionera i visionaria darwinista de la ramificació, sinó que més aviat la inclou amb una imatge d’intercanvis entre branques, com si fossin empelts. Però, el més important és que el patró que estem observant actualment ens permet sospesar el paper relatiu de les barreres d’aïllament enfront dels processos adaptatius (p. ex., la selecció natural) i no adaptatius (p. ex., la deriva). El resultat d’aquesta anàlisi dóna cada vegada més suport al fet que la selecció natural és determinant en la formació de les espècies, una idea totalment darwinista. D’aquí que el títol d’aquest capítol, que pot semblar agosarat per als defensors de la visió clàssica de l’espècie vertical, amb barreres d’aïllament i transmissió gènica vertical exclusiva, serveixi per vindicar el paper generador i cohesionant de la selecció natural darwinista en l’especiació.
148 A. Fontdevila
AGRAÏMENTS L’autor agraeix a Montserrat Peiró la seva col·laboració en el dibuix de les figures. Aquest treball és en part el resultat de les converses amb molts dels meus estudiants, col·laboradors i col·legues, i de la meva recerca en especiació finançada per nombrosos ajuts del Ministeri d’Educació i Ciència, dels fons FEDER de la Unió Europea i la Generalitat de Catalunya. A tots ells manifesto aquí la meva gratitud. Tanmateix, les idees i les propostes d’aquest treball són exclusivament responsabilitat meva. BIBLIOGRAFIA Andersson, J. O. (2005). «Lateral gene transfer in eukaryotes». Cell Mol. Life Sci., 62: 1182-1197. Arnold, M. L. (1997). Natural hybridization and evolution. Nova York: Oxford University Press. — (2006). Evolution through genetic exchange. Nova York: Oxford University Press. Barluenga, M.; Stöltying, K. N.; Salzburger, W.; Muschick, M.; Meyer, A. (2006). «Sympatric speciation in Nicaraguan crater lake cichlid fish». Nature, 439: 719-723. Bergthorsson, U.; Adams, K. L.; Thomason, B.; Palmer, J. D. (2003). «Widespread horizontal transfer of mitochondrial genes in flowering plants». Nature, 424: 197-201. Bush, G. L. (1993). «Host race formation and sympa tric speciation in Rhagoletis fruit flies (Diptera: Tephritidae)». Psyche, 99: 335-357. — (1994). «Sympatric speciation in animals: new wine in old bottles». Trends Ecol. Evol., 9: 285-288. — (1998). «The conceptual radicalization of an evolutionary biologist». A: Howard, D. J.; Berlocher, S. [ed.]. Endless forms: species and speciation. Nova York: Oxford University Press, 425-438. Coyne, J. A.; Orr, H. A. (2004). Speciation. Sunderland: Sinauer Associates. Darwin, C. R. (1859). On the origin of species by means of natural selection, or the preservation of favoured races in the struggle for life. 1a ed. Londres: John Murray. — (1869). On the origin of species by means of natural selection, or the preservation of favoured races in the struggle for life. 5a ed. Londres: John Murray. — (1872). On the origin of species by means of natural
selection, or the preservation of favoured races in the struggle for life. 6a ed. Londres: John Murray. Davis, C. C.; Wurdack, K. J. (2004). «Host-to-parasite gene transfer in flowering plants: phylogenetic evidence from Malpighiales». Science, 305: 676678. Dieckmann, U.; Doebeli, M.; Metz, J. A. J.; Tautz, D. [ed.]. (2004). Adaptive speciation. Cambridge: Cambridge University Press. Dobzhansky, T. (1935). «A critique of the species concept in biology». Philos. Sci., 2: 344-355. — (1937). Genetics and the origin of species. Nova York: Columbia University Press. Dowling, T. E.; DeMarais, B. D. (1993). «Evolutionary significance of introgressive hybridization in cyprinid fishes». Nature, 362: 444-446. Dunning Hotopp, J. C.; Clark, M. E.; Oliveira, D. C. S. G. [et al.] (2007). «Widespread lateral gene transfer from intracellular bacteria to multicellular eukaryotes». Science, 317, 1753-1756. Eckenwalder, J. E. (1984). «Natural intersectional hybridization between North American species of Populus (Salicaceae) in sections Aigeiros and Tacamahaca. III. Paleobotany and evolution». Can. J. Bot., 62: 336-342. Feder, J. L.; Berlocher, S. H.; Roethele, J. B. [et al.] (2003). «Allopatric genetic origins for sympatric host-plant shifts and race formation in Rhagoletis». Proc. Natl. Acad. Sci. USA, 100: 10314-10319. Feder, J. L.; Chilcote, C. A.; Bush, G. L. (1988). «Genetic differentiation between sympatric host races of Rhagoletis pomonella». Nature, 336: 61-64. Feder, J. L.; Stolz, U.; Lewis, K. M.; Perry, W. M.; Roethele, J. B.; Rogers, A. (1997). «The effects of winter length on the genetics of apple and hawthorn races of Rhagoletis pomonella (Diptera: Tephritidae)». Evolution, 51: 1862-1876. Feder, J. L.; Xie, X.; Rull, J. [et al.] (2005). «Mayr, Dob zhansky, and Bush and the complexities of sympatric speciation in Rhagoletis». Proc. Natl. Acad. Sci. USA, 102: 6573-6580. Fontdevila, A. (2004). «Hybrid speciation by transposition». A: Moya, A.; Font, E. [ed.]. Evolution. From molecules to ecosystems. Nova York: Oxford University Press, 182-194. Goldenfeld, N.; Woese, C. (2007). «Biology’s next revolution». Nature, 445: 369. Grant, V. (1957). «The plant species in theory and practice». A: Mayr, E. [ed.]. The species problem. Washington: American Association for the Advancement of Science, 39-80. — (1981). Plant speciation. Nova York: Columbia University Press. Gross, B. L.; Rieseberg, L. H. (2005). «The ecologi-
L’espècie horitzontal 149
cal genetics of homoploid hybrid speciation». J. Hered., 96: 241-252. Hewitt, G. M. (2000). «The genetic legacy of the Quaternary ice ages». Nature, 405: 907-913. — (2004). «Using molecules to understand the distribution of animal and plant diversity». A: Moya, A.; Font, E. [ed.]. Evolution: from molecules to ecosystems. Nova York: Oxford University Press, 157170. Huang, J.; Mullapudi, N.; Lancto, C. A. [et al.] (2004). «Phylogenomic evidence supports past endosymbiosis, intracellular and horizontal gene transfer in Cryptosporidium parvum». Genome Biol., 5: R88. Jain, R.; Rivera, M. C.; Lake, J. A. (1999). «Horizontal gene transfer among genomes: The complexity hypothesis». Proc. Natl. Acad. Sci. USA, 96: 38013806. Kimura, M. (1968). «Evolutionary rate at the molecular level». Nature, 217: 624-626. Klicka, J.; Zink, R. M. (1997). «The importance of recent ice ages in speciation: a failed paradigm». Science, 277: 1666-1669. — (1999). «Pleistocene effects on North American songbird evolution». Proc. R. Soc. Lond. B, 266: 695700. Knowlton, N.; Weigt, L. A. (1998). «New dates and new rates for divergence across the Isthmus of Panama». Proc. R. Soc. Lond. B, 265: 2257-2263. Kocher, T. D. (2004). «Adaptive evolution and explosive speciation: the cichlid fish model». Nature, 5: 288-298. Lawrence, J. G.; Ochman, H. (1998). «Molecular archaeology of the Escherichia coli genome». Proc. Natl. Acad. Sci. USA, 95: 9413-9417. Leitch, A. R. (2007). «The dynamic interplay between genomic DNA and the outside world». Heredity, 98: 61-62. Madlung, A.; Tyagi, A. P.; Watson, B. [et al.] (2005). «Genomic changes in synthetic Arabidopsis polyploids». Plant J., 41: 221-230. Mallet, J. (2005a). «Speciation in the 21st century». Heredity, 95: 105-109. — (2005b). «Hybridization as an invasión of the genome». Trends Ecol. Evol., 20: 229-237. Maynard Smith, J. (1966). «Sympatric speciation». Am. Nat., 100: 637-650. Mayr, E. (1942). Systematics and the origin of species. Nova York: Columbia University Press. — (1963). Animal species and evolution. Cambridge: Belknap Press. — (1970). Populations, species, and evolution. Cambridge: Belknap Press. McClintock, B. (1984). «The significance of response of the genome to challenge». Science, 226: 792-801.
Menken, S. B. J.; Roessingh, P. (1998). «Evolution of insect-plant associations: sensory perceptions and receptor modifications, direct food specializations, and host shifts in phytophagous insects». A: Howard, D. J.; Berlocher, S. H. [ed.]. Endless forms: species and speciation. Oxford: Oxford University Press, 145-156. Mower, J. P.; Stefanovic, S.; Young, G. J.; Palmer, J. D. (2004). «Gene transfer from parasitic to host plants». Nature, 432: 165-166. Murad, L.; Bielawski, J. P.; Matyasek, R. [et al.] (2004). «The origin and evolution of geminivirus-related DNA sequences in Nicotiana». Heredity, 92: 352358. Navarro, A.; Barton, N. H. (2003). «Chromosomal speciation and molecular divergence—accelerated evolution in rearranged chromosomes». Science, 300: 321-324. Nei, M. (2005). «Selectionism and neutralism in molecular evolution». Mol. Biol. Evol., 22: 2318-2342. Noor, M. A. (1999). «Reinforcement and other consequences of sympatry». Heredity, 83: 503-508. Noor, M. A. F.; Grams, K. L.; Bertucci, L. A.; Reiland, J. (2001). «Chromosomal inversions and the reproductive isolation of species». Proc. Natl. Acad. Sci. USA, 98: 12084-12088. Powell, J. R. (1983). «Interspecific cytoplasmic gene flow in the absence of nuclear gene flow: evidence from Drosophila». Proc. Natl. Acad. Sci. USA, 80: 492-495. Quesada, H.; Posada, D.; Caballero, A.; Morán, P.; Rolán Álvarez, E. (2007). «Phylogenetic evidence for multiple sympatric ecological diversification in a marine snail». Evolution, 61: 1600-1612. Rieseberg, L. H.; Noyes, R. D. (1998). «Genetic mapbased studies of reticulate evolution in plants». Trends Plant Sci., 3: 254-259. Rieseberg, L. H.; Raymond, O.; Rosenthal, D. M. [et al.] (2003). «Major ecological transitions in wild sunflowers facilitated by hybridization». Science, 301: 1211-1216. Rieseberg, L. H.; Sinervo, B.; Randal, C.; Ungerer, M.; Arias, D. M. (1996). «Role of gene interactions in hybrid speciation: Evidence from ancient and experimental hybrids». Science, 272: 741-745. Rolán-Alvarez, E. (2007). «Sympatric speciation as a by-product of ecological adaptation in the Galician Littorina saxatilis hybrid zone». Journal of Molluscan Studies, 73: 1-10. Tarlinton, R. E.; Meers, J.; Young, P. R. (2006). «Retroviral invasion of the koala genome». Nature, 442: 79-81. Templeton, A. R. (1989). «The meaning of species and speciation: A genetic perspective». A: Otte, D.;
150 A. Fontdevila
Endler, J. [ed.]. Speciation and its consequences. Sunderland: Sinauer Associates, 3-27. — (1998). «Species and speciation: geography, population structure, ecology, and gene trees». A: Howard, D. J.; Berlocher, S. H. [ed.]. Endless forms: species and speciation. Oxford: Oxford University Press, 32-43. Vilà, M.; D’Antonio, C. (1998). «Fitness of invasive Carpobrotus (Aizoaceae) hybrids in coastal California». Ecoscience, 5: 191-199. Wallace, A. R. (1852). «On the monkeys of the Amazon». Proc. Zool. Soc. Lond., 20: 107-110. Wang, R. L.; Wakeley, J.; Hey, J. (1997). «Gene flow and natural selection in the origin of Drosophila pseudoobscura and close relatives». Genetics, 147: 1091-1106.
Wood, T. K. (1993). «Speciation in the Enchenopa binotata complex (Insects: Homoptera: Membracidae)». A: Lees, D. R.; Edwards, D. [ed.]. Evolutionary patterns and processes (Linnean Society Symposium N. 14). Londres: Linnean Society, 299-318. Zhao, X. P.; Si, Y.; Hanson, R. E. [et al.] (1998). «Dispersed repetitive DNA has spread to new genomes since polyploid formation in cotton». Genome Res, 8: 479-492. Zuckerkandl, E.; Pauling, L. (1962). «Molecular disease, evolution, and genetic heterogeneity». A: Kasha, M.; Pullman, B. [ed.]. Horizons in biochemistry. New York: Academic Press, 189-225.
DOI: 10.2436/20.1501.02.82
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 151-167
EVOLUCIÓ CROMOSÒMICA I DE LA MIDA GENÒMICA EN ELS ANIMALS Eduard Petitpierre Departament de Biologia, Universitat de les Illes Balears i IMEDEA (CSIC-UIB). Adreça per a la correspondència: Eduard Petitpierre. Laboratori de Genètica, Departament de Biologia, Universitat de les Illes Balears. Ctra. Valldemossa, km. 7,5. 07122 Palma de Mallorca. Adreça electrònica: dbaepv@uib.es. RESUM Els complements cromosòmics dels animals són extraordinàriament variables en nombre i configuració. El seu estudi pot realitzar-se a diferents nivells de resolució, des dels més elementals de cariologia alfa fins als més sofisticats de cariologia zeta, com la moderna tècnica de les pintures cromosòmiques. Alguns grups d’animals són molt heterogenis cromosòmicament, mentre que d’altres són d’una sorprenent uniformitat, i aquestes diferències s’interpreten discutint les causes implicades en els processos d’evolució cariològica. Com a casos particulars, s’esmenten els polimorfismes cromosòmics, els cariotips homoseqüencials, indistingibles en el seu patró de bandes, i les espècies críptiques, de morfologies quasi idèntiques però ben separables pels cariotips. El paper dels canvis cromosòmics en la formació de noves espècies s’il·lustra amb exemples representatius i també es discuteixen les possibles correlacions de l’evolució cromosòmica amb la molecular i l’organísmica. La mida genòmica dels animals també mostra una considerable variabilitat que no depèn, en gran part, de la complexitat organísmica ni del nombre de gens. L’interès evolutiu de la mida genòmica i dels seus efectes nucleotípics, deguts únicament a la massa de DNA nuclear, són comentats en darrer terme tant a escala cel·lular com organísmica. Paraules clau: cariotips, canvis cromosòmics, canvis en la mida genòmica, causes evolutives, especiació. CHROMOSOMAL AND GENOME SIZE EVOLUTION IN ANIMALS SUMMARY The chromosomal sets of animals are enormously variable in number and configuration. Their study can be performed through different levels of accuracy from the most elemental
152 E. Petitpierre
of karyology alpha to the highly sophisticated of karyology theta, such as the modern technique of «chromosome paintings». Some groups of animals are strikingly heterogeneous chromosomally whereas others share an amazing uniformity, and these differences can be interpreted by discussing the causes implied in the processes of karyological evolution. The particular cases of chromosomal polymorphisms, of the homosequencial karyotypes, indistinguishable in their banding patterns, and of the cryptic species, having almost identical morphologies but separable by their karyotypes, are briefly commented. The role of chromosomal changes in the origin of new species is illustrated by some representative examples and the possible correlations between chromosomal evolution versus molecular and organismic ones are also discussed. The genome size of animals shows a high variation which, in a great part, is not dependent on the organismic complexity and the number of genes. The evolutionary effects of the genome size and its nucleotypic effects, due to the nuclear DNA mass only, are finally dealt with, both at cellular and organismic levels. Key words: karyotypes, chromosomal shifts, genome size changes, evolutionary causes, speciation. INTRODUCCIÓ Tots els organismes cel·lulars, procariotes i eucariotes, tenen el seu material genètic constituït per llargues seqüències de parells de nucleòtids de DNA, dins d’estructures de grandàries i formes variables, però pel que fa referència als eucariotes, generalment són allargades i les anomenem cromosomes. Aquestes estructures es transmeten de manera constant i regular, de cèl· lula a cèl·lula i de generació a generació, i són les responsables del manteniment de les característiques genètiques de cada espècie i de les variacions individuals que observem en totes. Això és en gran part fruit de la segregació aleatòria de cada parell de cromosomes homòlegs en les dues divisions cel·lulars de la meiosi, durant el procés de formació de les cèl·lules reproductores, gàmetes o espores. El conjunt de cromosomes d’un individu o espècie es coneix amb el nom de cariotip, i cadascun està definit pel nombre d’aquests elements i per la seva morfologia, estudiada quasi sempre durant el període de màxima condensació del seu material, la cromatina, en la metafase de la mitosi. En els
eucariotes de reproducció bisexual, la gran majoria dels animals, la meitat dels cromosomes provenen d’un progenitor i l’altra meitat de l’altre. En la nostra espècie, Homo sapiens, el complement cromosòmic diploide està representat per 2n = 46 cromosomes, vint-i-tres d’origen patern i vint-i-tres d’origen matern, i aquests cromosomes són els transmesos, respectivament, pels espermatozoides i els òvuls, a partir dels quals, en la fecundació, donaran lloc als nous individus pel desenvolupament embrionari dels zigots resultants d’aquesta fecundació. Si bé el cariotip de cada espècie se sol mantenir constant, no és invariable, i igual com passa amb els gens, els cromosomes també són susceptibles d’experimentar canvis, de sofrir mutacions que n’alterin el nombre o l’estructura. Al llarg de l’evolució, els cariotips han mostrat una extraordinària quantitat de canvis, d’on s’esdevé que cada espècie pot diferenciar-se per un cariotip propi, ben distingible del d’espècies veïnes, excepte en casos molt rars (White, 1978).
Evolució cromosòmica i de la mida genòmica en els animals 153
NIVELLS D’ANÀLISI CARIOTÍPICA Els cariotips poden estudiar-se a diversos nivells de resolució, des dels més bàsics fins als més detallats, Així, White (1978) ja va distingir sis nivells d’anàlisis cariotípiques qualificats com cariologia alfa, beta, gamma, delta, èpsilon i zeta. En l’alfa només es determinen el nombre cromosòmic i les mides aproximades d’aquests cromosomes; en alguns grups d’animals com són els insectes lepidòpters (papallones) i els aràcnids araneids (aranyes), de cromosomes petits i molt semblants, no es pot ultrapassar a penes aquest primer nivell d’anàlisi. La cariologia beta tracta no tan sols del nombre dels cromosomes, sinó també les seves mides i posicions dels centròmers, i mesura, per tant, les longituds de cada braç cromosòmic, i identifica, si s’escau, els cromosomes sexuals; la majoria dels estudis citogenètics d’animals són d’aquest tipus. En els següents nivells d’anàlisi cariotípica ja s’obtenen dades sobre la diferenciació longitudinal dels cromosomes. En la cariologia gamma s’aconsegueixen patrons de bandes per mitjà de tractaments específics, com són els del bandeig G, que detecta regions riques en nucleòtids d’A-T (adenina-timina), o els de bandeig C emprats per localitzar regions d’heterocromatina constitutiva, regions que estan permanentment condensades al llarg del cicle cel·lular i que estan formades principalment per seqüències de DNA altament repetitiu dispostes en tàndem, el DNA satèl·lit. Així com les bandes C s’han obtingut en quasi tots els grups d’animals, les bandes G sols apareixen en els vertebrats superiors, rèptils, aus i mamífers, i molt rarament en amfibis i peixos. La hibridació in situ de sondes de DNA o RNA marcades amb isòtops radioactius o amb fluorocroms (FISH, fluorescent in situ hybridization), permet situar els DNA satèl·lits i les regions organitzadores nucleolars (NOR), que con-
tenen els gens dels RNA ribosòmics grans (18S i 28S). Avui dia, la utilització de sondes múltiples, marcades amb fluorocroms de colors distints, assoleix un nivell de resolució altíssim, que fa possible poder analitzar homologies cromosòmiques entre espècies emparentades, tècniques conegudes amb el nom de chromosome paintings, és a dir, «pintures cromosòmiques». Per acabar, certs tipus de cromosomes, excepcionals perquè es troben només en determinades cèl·lules d’uns pocs grups d’animals, com són els cromosomes politènics de les larves de molts insectes dípters i els cromosomes plomosos dels oòcits d’amfibis urodels (salamandres i tritons) i d’alguns peixos, faciliten un grau de resolució encara millor que els precedents, i per aquest motiu es classifiquen com els nivells de cariologia èpsilon i delta, respectivament. Nivells bàsics de cariologia El nombre de cromosomes de les espècies d’animals varia entre rangs molt amplis, des de 2n = 2 en el nematode Parascaris univalens i en la formiga Myrmecia pilosula (Sumner, 2003) fins a 2n = 446 cromosomes en la papallona Lysandra atlantica i el peix Diptychus dipogon (White, 1978), valors, però, que no són tan grans com els trobats en algunes plantes, amb espècies de falgueres que tenen uns mil dos-cents cromosomes, ja que la poliploïdia ha tingut un paper molt més rellevant en les plantes vasculars que en els animals. I si considerem el nombre de cromosomes sexuals, les diferències interespecífiques, malgrat que no siguin tan accentuades, també poder ser apreciables, des d’espècies en què el sexe heterogamètic, generalment el masculí, presenta un sol cromosoma sexual (sistema XO), fins a sistemes de cromosomes sexuals múltiples, dels quals el cas més extrem és el dels
154 E. Petitpierre
insectes coleòpters Blaps cribosa i B. polychresta, de mascles amb divuit cromosomes sexuals, 12X6Y, i femelles amb 24X (Smith i Virkki, 1978). Quan s’estudien determinats grups taxonòmics d’animals, ens podem trobar tant amb una sorprenent uniformitat en els nivells bàsics de cariologia com amb una marcada heterogeneïtat. Per exemple, quasi tots els mamífers carnívors de la família Felidae, en la qual s’inclou el nostre gat domèstic, tenen trenta-vuit cromosomes d’estructures molt semblants; contràriament, els carnívors de la família Canidae, que comprenen gossos, llops i guineus, tenen un rang molt gran, entre 2n = 38 i 2n = 78 cromosomes. Certs ordres d’insectes, dels quals el dels lepidòpters és el més paradigmàtic, mostren una altíssima variabilitat citogenètica, amb nombres extrems de 2n = 12 i 2n = 446 cromosomes (White, 1978). Fins i tot dins del mateix gènere ens podem trobar amb espècies de cariotips molt distints, com els coleòpters crisomèlids del gènere Chrysolina, que presenten valors del nombre diploide entre 2n = 22 i 2n = 50 cromosomes (Petitpierre, no publicat). El cérvol Muntiacus muntjak de l’Índia té 2n = 7 el mascle i 2n = 6 la femella, mentre que el molt semblant M. reevesi de la Xina en té 2n = 46 en ambdós sexes; aquest fet fou qualificat com «l’escàndol dels muntiacs» (Chiarelli i Capanna, 1973). Nivells avançats de cariologia Fa ja més de quaranta anys que els estudis de cromosomes politènics en distints grups d’espècies hawaianes de Drosophila van permetre de descobrir les anomenades espècies de cariotips homoseqüencials, és a dir, espècies amb patrons de bandes absolutament idèntics en tots els cromosomes (Carson et al., 1967). No obstant això, aques-
ta identitat cromosòmica no es reflectia de cap manera en la morfologia externa, ja que aquestes espècies eren de fenotips ben diferenciats uns dels altres. Anàlisis citogenètiques posteriors feren possible reconèixer en algunes, però no en d’altres, diversitat en les quantitats i tipus de DNA satèl·lits, els quals no estan representats dins del patró dels cromosomes politènics perquè es troben en la massa del cromocentre, que engloba les regions heterocromàtiques de tots els cromosomes. Val a dir, malgrat tot, que el percentatge d’espècies animals de cariotips homoseqüencials no deu superar l’1 % (White, 1978). D’altra banda, l’ús de les tècniques de bandeig G i de les pintures cromosòmiques que hem esmentat abans ha obert un ventall insospitat des dels anys vuitanta i noranta per als estudis de citogenètica evolutiva. Així, en les espècies de primats més directament emparentades amb els humans, el ximpanzé, goril·la i l’orangutan, aquestes anàlisis han demostrat que el cromosoma 2 humà és fruit d’una fusió entre dos cromosomes dels altres primats, que tingué lloc en el possible avantpassat original del llinatge humà, i també que els cromosomes humans 5 i 6, entre d’altres, difereixen dels del ximpanzé i el goril·la per petits canvis estructurals (Yunis i Prakash, 1982). En aquest sentit, cal remarcar que els cromosomes humans i del ximpanzé que difereixen en reordenacions estructurals han sofert una evolució dels gens codificadors de proteïnes que és el doble de ràpida que la dels gens dels cromosomes colineals, fet que podria estar implicat en la separació evolutiva dels dos llinatges (Navarro i Barton, 2003). Per mitjà de la tècnica de les pintures cromosòmiques s’ha pogut establir el cariotip ancestral dels camèlids (dromedari, camell bactrià, alpaca i guanac) i mesurar el grau d’homologia del cariotip del dromedari respecte a l’humà, que comparteix amb aquell
Evolució cromosòmica i de la mida genòmica en els animals 155
quaranta-set segments cromosòmics conservats, i del dromedari respecte als del porc i el vedell, ambdós parells d’espècies amb cinquanta-tres segments conservats (Balmus et al., 2007). Així mateix, aquesta tècnica ha permès d’inferir el cariotip ancestral dels mamífers euteris (placentaris, no marsupials), a partir de l’anàlisi de vint-i-vuit d’aquestes espècies, cariotip constituït per 2n = 50 cromosomes; a més a més, ha permès detectar les homologies d’aquests cromosomes respecte dels cromosomes humans, de manera que deu parells de cromosomes de la presumpta espècie ancestral presentaven homologies completes, nou tenien homologies parcials i set homologies disruptes amb parts de dos cromosomes humans distints (Richard et al., 2003). MUTACIONS CROMOSÒMIQUES: DIFERENTS TIPUS Les mutacions cromosòmiques poden afectar l’estructura sense alterar el contingut gènic, com passa en les inversions i en les translocacions, o produir pèrdues o guanys gènics en delecionar-se o duplicarse segments cromosòmics, i també poden ocórrer canvis en cromosomes sencers, per excés o per defecte en relació amb el cariotip original, que en aquest darrer cas anomenem mutacions per canvi en la ploïdia, bé sigui en cromosomes individuals (aneuploïdia) o en tots els elements del cariotip (haploïdia i poliploïdia). Evidentment, els efectes fenotípics que poden derivar-se de cada classe d’aquestes mutacions serà distint i dependrà dels gens afectats i de les modificacions que puguin ocasionar en el comportament dels cromosomes en la mitosi, però sobretot en la meiosi i, per tant, en últim terme, sobre la producció de gàmetes normals. És ben palès
que les reorganitzacions de grups de gens sense pèrdues ni guanys tindran conseqüències fenotípiques menors que quan es donen aquestes pèrdues o guanys, i pel que fa a les primeres, causades per delecions, l’efecte deleteri serà més greu que el dels segons, deguts a duplicacions. Pel que fa a les duplicacions, de vegades poden tenir un significat evolutiu valuós, ja que, en repetirse certs gens, les noves còpies poden evolucionar i adquirir funcions inèdites o millorades, sense que els gens originals perdin les seves (Ohno, 1970). En aquest sentit es coneixen bastants exemples de famílies gèniques generades per fenòmens de duplicacions cromosòmiques. Tendències de l’evolució cromosòmica Quan un grup d’animals està suficientment ben estudiat en els nivells bàsics de cariologies alfa i beta, és comú observar valors modals propis de cada grup taxonòmic. Així, per exemple, en els insectes lepidòpters (papallones) els valors modals haploides són n = 29-31; en els coleòpters (escarabats), n = 10; entre els rèptils, en els cocodrils és n = 16, però en les serps és n = 18; en les aus els valors més freqüents són n = 39-42, mentre que en mamífers són n = 19-24 (White, 1973; Imai, 1986). Alguns autors assumeixen que els valors modals poden interpretar-se com els ancestrals per a cada grup d’organismes; no obstant això, a part que els valors ancestrals depenen de la fiabilitat del mostreig, perquè aquest pot ser restringit a determinats subgrups del tàxon principal, o limitat sobretot a les espècies d’una regió geogràfica particular, no es pot establir una relació directa entre valor modal i ancestral. Sí que sembla més adient basar aquesta relació entre el valor més estès entre els diferents subgrups del tàxon principal i l’ancestral, tenint present
156 E. Petitpierre
que el valor més estès no coincideix sovint amb el modal, opinió defensada per Maddison (1985), que a la vegada aconsella utilitzar un grup extern emparentat amb el que es vol analitzar, que acrediti una sèrie de caràcters primitius, els plesiomòrfics en la moderna terminologia cladística. Com que aquestes hipòtesis de tendències en l’evolució cromosòmica no estan exemptes d’un bon grau d’especulació, no és gens estrany que per explicar l’evolució cariològica dels mamífers, per exemple, certs autors proposin la hipòtesi de les fusions des dels valors ancestrals més alts del nombre cromosòmic fins als més baixos, i altres la hipòtesi modal amb augments i reduccions des dels valors intermedis més freqüents, i un tercer grup d’autors la hipòtesi de les fissions, per augments unidireccionals des dels nombres més baixos fins als més alts (Imai, 1986). Avui dia, la combinació de dades de bandeig G i de pintures cromosòmiques en mamífers ha aclarit bastant els processos d’evolució cariològica dels mamífers, de manera que en un treball recent ja esmentat, Richard et al. (2003) estableixen el presumpte cariotip ancestral dels mamífers euteris amb 2n = 50 cromosomes; per tant donen suport a la hipòtesi modal suggerida anteriorment, amb canvis tant per augments com per reduccions del nombre de cromosomes, a part d’altres reordenacions estructurals. Polimorfisme cromosòmic En algunes espècies d’animals no és rar trobar diferències cariotípiques entre poblacions o entre individus d’una mateixa població, i en aquest darrer cas es diu que presenten polimorfisme cromosòmic. En les espècies de Drosophila, com ja hem comentat abans, el polimorfisme per inver-
sions paracèntriques és un fenomen molt freqüent i ben sovint s’ha demostrat el significat adaptatiu a condicions ambientals, de latitud, altitud o estacionals, d’ordenacions cromosòmiques particulars (Dobzhansky, 1951; White, 1973; Lewontin, 1974; Prevosti, 1979). A més a més, el polimorfisme per inversions paracèntriques s’ha detectat en moltes altres famílies de dípters a part dels drosofílids (White, 1973). Una prova molt il· lustrativa del paper que tenen les inversions paracèntriques en l’adaptació al medi de les poblacions de D. subobscura que han colonitzat Amèrica ha estat la constatació que aquesta espècie, introduïda accidentalment allà fa uns trenta anys, mostra les mateixes inversions i amb uns gradients latitudinals molt semblants als trobats a Europa i al nord d’Àfrica, la qual cosa qual exclou altres explicacions no adaptatives o històriques d’aquestes dades (Prevosti et al., 1988, 1990; Serra, 2002). Tots els individus heterozigots per a reordenacions cromosòmiques estructurals, com són les inversions i les translocacions, poden tenir una fertilitat menor de la normal deguda a les alteracions meiòtiques causants de desequilibris en les dosis gèniques. No obstant això, si els sistemes genètics d’algunes espècies eviten aquesta «penalització», aleshores això no suposa cap inconvenient sinó tot el contrari. En Droso phila els individus del sexe masculí no manifesten recombinació meiòtica; per tant, encara que siguin heterozigots per a una inversió, no produiran mai gàmetes amb dosis gèniques desequilibrades. En les femelles sí que hi ha recombinació, però de les quatre cèl·lules derivades de la meiosi, només una és funcional, l’òvul. Com que els cromosomes portadors de dosis gèniques desequilibrades passen a les cèl·lules no funcionals —els tres corpuscles polars que degeneren—, així, com indica White (1973), les femelles de Drosophila no han de pagar
Evolució cromosòmica i de la mida genòmica en els animals 157
«la multa» de l’heterozigositat estructural per les inversions, atesos els avantatges que els suposa aquesta heterozigositat. Altres insectes amb polimorfismes per inversions, com són els llagosts (ortòpters), empren estratègies distintes per no pagar els efectes desfavorables de l’heterozigosi sobre la meiosi, i quan aquestes inversions es troben en heterozigosi actuen com a supressores de l’entrecreuament meiòtic i, per tant, no es produeixen gàmetes ni zigots amb dosis gèniques desequilibrades que en determinin la inviabilitat (White, 1973). CAUSES DE L’EVOLUCIÓ CROMOSÒMICA I DE LA MIDA GENÒMICA Els canvis en el nombre i en l’estructura dels cromosomes, així com en la mida dels genomes, són fruit de les mutacions, i de la mateixa manera que passa amb les mutacions gèniques, aquests canvis són fenòmens aleatoris perquè no podem saber quan, com, i en quines cèl·lules es produiran. Tan sols els podem estimar amb xifres de probabilitat d’ocurrència, i les que s’obtenen són del voltant de les trobades per a les mutacions gèniques, generalment entre 10 –4 i 10 –3 per gàmeta i generació (Lande, 1979). També, com succeeix en les mutacions gèniques, les freqüències de mutacions cromosòmiques augmenten apreciablement quan s’apliquen agents mutagènics, físics o químics. Cal destacar que les mutacions cromosòmiques que ens interessen des del punt de vista evolutiu són les que afecten les cèl·lules germinals, ja que són les transmeses a la descendència i, en conseqüència, les heretables. Les mutacions de cèl·lules somàtiques, tot i que poden tenir una gran rellevància clínica —pensem per exemple en diversos tipus de càncers causats per alteracions cromosòmiques—, en
no heretar-se, tenen un paper nul en l’evolució. L’estructura cromosòmica pot condicionar que certs canvis siguin més freqüents que altres. Així, en els cariotips constituïts per cromosomes acrocèntrics, amb un braç llarg i un altre molt curt, sovint quasi invisible, com el del nostre ratolí comú Mus musculus domesticus, els canvis prevalents són els de fusions entre cromosomes, per donar elements metacèntrics amb dos braços llargs, a partir dels dos acrocèntrics fusionats. Contràriament, quan els cariotips presenten molts cromosomes metacèntrics o submetacèntrics, amb braços llargs semblants o moderadament distints, les fissions cromosòmiques són, generalment, més comunes, i l’evolució cariotípica s’esdevé mitjançant l’augment del nombre diploide, a diferència del cas precedent. En certs llinatges evolutius, sovint es van donant el mateix tipus de canvis cromosòmics, com si fos una mena de repetició direccional, fenomen reconegut i batejat per White (1954) amb el nom de ortoselecció cariotípica, però que no pot interpretar-se de cap manera com una tendència finalista i invariable. L’alta taxa d’inversions paracèntriques detectades en el gènere Drosophila, amb unes setanta mil reordenacions cromosòmiques d’aquest tipus per a les dues mil espècies descrites, i amb una mitjana de catorze per espècie en condició polimòrfica (White, 1978), també es pot considerar un exemple d’ortoselecció cariotípica. D’altra banda, l’ortoselecció cariotípica també depèn dels sistemes genètics que permetin el manteniment d’aquests canvis cromosòmics en les poblacions naturals, com ja hem tractat en referir-nos als factors implicats en el polimorfisme per inversions paracèntriques en les espècies de Drososphila, sempre que les mutacions cromosòmiques no interfereixin negativament en les mides del nucli cel·lular, ni en el funcionament normal
158 E. Petitpierre
del fus acromàtic en les divisions mitòtiques i meiòtiques. Causes directes L’evolució cromosòmica comporta necessàriament l’existència de mutacions; si no fos així no podria haver-hi cap evolució cromosòmica. Cal assenyalar també que les taxes de mutació cromosòmica no han de ser coincidents amb les d’evolució cariotípica ni tampoc no han d’estar relacionades amb les taxes d’especiació. Les taxes de mutació cromosòmica reflecteixen el nivell bàsic en el qual apareixen noves alteracions dins de les poblacions d’animals, plantes o bacteris, mentre que les taxes d’evolució cromosòmica mesuren aquells canvis establerts com a polimorfismes o que ja s’han fixat en les poblacions o les espècies. Els agents causals de l’evolució cromosòmica poden ser directes o indirectes. Diferents causes directes poden induir canvis cromosòmics aprofitables per l’evolució: a) La distorsió de la segregació (segregation distortion, SD) determina una disjunció cromosòmica distinta de l’1:1 —per exemple en D. melanogaster s’ha trobat una mutació SD que produeix funcionalitat únicament en els espermatozoides portadors de la mateixa o segregacions tan esbiaixades com la de 20:1 a favor dels gàmetes mutants. b) Molts híbrids interespecífics naturals o induïts experimentalment mostren taxes de mutació clarament superiors a les normals, com passa en els mascles híbrids de l’encreuament entre D. serido i D. buzzatii (Naviera i Fontdevila, 1985), i també en els híbrids entre altres espècies de dípters i ortòpters (King, 1993); segons sembla, la hibridació interespecífica determina un estrès genòmic responsable de l’activació d’elements genètics mòbils, transposons i, en darrer terme, dels notables increments en les taxes
de mutació cromosòmica, juntament amb una clara davallada en la fertilitat. c) Tot i que els heterozigots per a una reordenació cromosòmica solen manifestar, en general, una reducció en la fertilitat deguda a les alteracions meiòtiques, si presenten un cert avantatge selectiu derivat de possibles interaccions gèniques entre gens reordenats o dels efectes de posició, aquest efecte pot compensar la pèrdua de fertilitat. d) Si l’homozigot per a la nova mutació cromosòmica presenta un avantatge selectiu enfront de l’homozigot original, aquesta mutació tindrà una probabilitat més alta de fixar-se que en l’alternativa contrària de selecció negativa o neutra. Encara que hi ha dades empíriques que donen suport a aquestes causes directes d’evolució cromosòmica, no solen ser molt freqüents i més aviat se solen invocar causes externes per explicar els processos de divergència cariològica entre espècies emparentades. Causes indirectes L’estructura poblacional i els sistemes de reproducció sexual són els factors externs de més pes per fixar els canvis cromosòmics produïts per mutacions. La grandària de població té un paper de primer ordre en aquest sentit, quan es tracta de poder fixar una variant cromosòmica neutra o quasi neutra davant de la selecció natural, sense selecció positiva o negativa que faciliti o restringeixi, respectivament, aquest procés. La probabilitat (p) que es fixi una mutació cromosòmica per causes purament aleatòries està determinada per l’equació de Nei (1975) p = e –S (N – 2)/2N, en què S és el coeficient de desavantatge selectiu de l’heterozigot i N la grandària efectiva de la població. Aquesta grandària efectiva no equival
Evolució cromosòmica i de la mida genòmica en els animals 159
al total dels individus de la població, perquè ni els immadurs ni els vells contribueixen a la descendència, i com els animals acostumen a tenir reproducció bisexual, s’ha de tenir en compte el nombre de mascles i de femelles madurs per obtenir la grandària efectiva de la població, la qual cosa, sovint, no és gens senzilla. En poblacions locals grans, per exemple, de N = 500 i amb valors de S petits com 0,05, les probabilitats de fixació són menyspreables, de P < 10 –13, però en poblacions petites de N ≤ 20, les probabilitats de fixació de les noves variants cromosòmiques ja són raonablement apreciables, i per a N = 20, p = 0,01 (Wilson et al., 1977). A més a més, si el sistema de reproducció afavoreix els encreuaments consanguinis aquestes probabilitats són encara majors. La capacitat de dispersió dels individus d’una espècie animal també influeix considerablement, perquè sovint quan menor sigui aquesta capacitat dispersiva major serà la probabilitat d’ocurrència dels aparellaments consanguinis. D’igual manera, l’estructura social pot facilitar el canvi evolutiu. Pensem, per exemple, en grups familiars constituïts per un sol mascle o un mascle dominant (mascle alfa), uns pocs mascles secundaris, bastants femelles i alguns individus immadurs. En un grup d’aquest tipus qualsevol mutació en el mascle dominant tindrà una probabilitat molt més alta de fixar-se que en altres animals d’estructura social distinta, sense aquesta organització jeràrquica. Moltes espècies de mamífers remugadors formen harems de la classe esmentada, en els quals es poden preveure taxes altes d’evolució cromosòmica. Wilson et al. (1974, 1975), Bush et al. (1977), White (1978) i Larson et al. (1984), publiquen dades experimentals molt interessants sobre taxes d’evolució cromosòmica en grups taxonòmics de vertebrats, que mostren valors fortament diferenciats uns dels altres
(vegeu la taula 1). Per elaborar aquestes dades es van comptar els canvis en el nombre de cromosomes i de braços cromosòmics per milió d’anys, a partir de les mesures temporals obtingudes en el registre fòssil d’aquests grups. Segons es pot comprovar en aquestes dades, no s’observa cap correlació entre la mitjana d’edat dels gèneres i les taxes de canvis cariotípics per a llinatges i milions d’anys, encara que els mamífers sembla que mostren taxes d’evolució cariotípica més altes que la resta de vertebrats. El llinatge amb el valor més alt és el dels cavalls (família Equidae), amb set espècies vivents, de rang cromosòmic comprés entre 2n = 32 i 2n = 66, i diferències morfològiques tan paleses com les que es poden observar entre l’ase Equus asinus i la zebra de muntanya E. zebra hartmannae. Contràriament, el de canvi cromosòmic més baix en els mamífers és el de les balenes. Segons Bush et al. (1977) la grandària efectiva de població és el factor essencial determinant de l’evolució cariotípica. Els èquids i els primats tenen una organització social que facilita l’evolució cromosòmica, perquè les poblacions estan fragmentades en petits grups o clans que, a més a més, manifesten una forta territorialitat i sovint també comportaments agressius enfront d’altres grups, ambdues característiques potenciadores de la divergència cariològica. També Arnason (1972), compara la variació cromosòmica dels cetacis (balenes i dofins) i dels pinnípedes (foques), que és molt petita, amb la dels mamífers rosegadors i insectívors, amb taxes clarament superiors a les d’aquells grups. Atribueix aquestes diferències principalment a dos factors: la fertilitat i la capacitat dispersiva. Els cetacis i els pinnípedes tenen baixa fertilitat i són grans migradors perquè ocupen ambients marins no delimitats en nínxols, trets
160 E. Petitpierre Taula 1. Taxes d’evolució cromosòmica en vertebrats Animal
Nre. de gèneres examinats
Cavalls Primats Rosegadors Artiodàctils Insectívors Marsupials Carnívors Rates pinyades Balenes
1 13 50 15 7 15 10 15 2
Mitjana per als mamífers Serps Iguanes i lacèrtids Tortugues i cocodrils Granotes Salamandres Peixos teleostis Mitjana per a vertebrats no mamífers
que fan difícil la fixació de qualsevol mutació cromosòmica en heterozigosi, contràriament al que passa en els rosegadors i insectívors, animals de gran fertilitat, molt sedentaris i que ocupen nínxols específics, condicions que promouen la fixació de noves mutacions cromosòmiques per efecte de la deriva genètica o els encreuaments consanguinis. Alguns grups de mamífers, com el dels carnívors de la família Felidae (felins), que inclou el gat domèstic, el lleó, el tigre, el lleopard o el linx, plantegen un dilema perquè acrediten taxes de variabilitat cromosòmica molt petites, malgrat que formin grups socials reduïts, quasi sempre unifamiliars. Podria ser que l’alta capacitat dispersiva dels felins compensi i anul·li els efectes de l’organització social unifamiliar o que aquests cariotips siguin molt estables i poc propensos a canvis per raons desconegudes.
14 16 14 15 11 12
Mitjana d’edat en milions d’anys 3,5 3,8 6,0 4,2 8,1 5,6 12,9 9,0 6,5
Canvis cariotípics per llinatge i milions d’anys 1,40 0,75 0,43 0,56 0,19 0,18 0,08 0,06 0,03
6,5
0,43
12,1 20,1 12,1 26,4 23,4 5,7
0,48 0,58 0,48 0,23 0,29 0,14
22,2
0,32
CANVIS CROMOSÒMICS I ESPECIACIÓ Fins fa relativament pocs anys, una bona part dels biòlegs evolutius creia que els únics canvis cromosòmics responsables dels fenòmens d’especiació eren els de poliploïdia, per hibridació interespecífica i duplicació posterior dels dos genomes de l’híbrid per donar el poliploide (Mayr, 1942, 1963; Dobzhansky et al., 1980; Futuyma, 1998). Com la poliploïdia és poc freqüent en els animals, la formació de noves espècies no es donava per reordenacions cromosòmiques estructurals sinó per acumulació de mutacions gèniques, quasi sempre en condicions d’aïllament geogràfic (especiació al·lopàtrica). Per a aquests autors les diferències citogenètiques que es detectaven generalment entre espècies emparentades es produïen després d’haver-se assolit l’aï-
Evolució cromosòmica i de la mida genòmica en els animals 161
llament reproductor entre aquestes, a partir de l’espècie original i, en conseqüència, eren posteriors al procés d’especiació. Si bé és evident que moltes mutacions cromosòmiques no tenen res a veure amb l’especiació, com els polimorfismes cromosòmics que hem comentat anteriorment, durant els darrers trenta anys s’han anat afegint proves que donen suport als processos d’especiació per canvi cromosòmic. En aquest sentit, s’han valorat quins canvis cromosòmics estructurals poden produir aïllament reproductor interespecífic postzigòtic en un sistema genètic particular. Així, els canvis robertsonians per fusions o fissions cèntriques, les fusions en tàndem i les translocacions recíproques en inversions pericèntriques múltiples alteren els patrons de disjunció cromosòmica en la meiosi i són causa clara d’esterilitat (King, 1993). En distintes poblacions italianes i suïsses del ratolí M. musculus domesticus s’han produït múltiples fusions cèntriques que han donat origen a races cromosòmiques o a noves espècies (Capanna et al., 1977). Una d’aquestes, per exemple, el M. poschiavinus de 2n = 26 cromosomes, mostra set fusions cèntriques fixades en homozigosi i té un grau molt alt d’aïllament reproductor respecte a l’espècie original (Gropp et al., 1970; Capanna et al., 1977; White, 1978). També les rates asiàtiques Rattus sordidus (2n = 32), R. colletti (2n = 42) i R. villosissimus (2n = 50), difereixen per múltiples fusions cromosòmiques, però són quasi idèntiques morfològicament, i no manifesten a penes divergències per als cinquanta-cinc locus gènics examinats mitjançant electroforesi; fins i tot hibriden entre si, encara que tots els híbrids són estèrils, o només els mascles, segons els tipus d’hibridació (King, 1993). Les fusions en tàndem també poden estar implicades en processos d’especiació, com es demostra en el cérvol indi Muntiacus muntjak, de 2n = 6 cromosomes, deri-
vat del cérvol xinès M. reevesi, de 2n = 46 cromosomes, amb el qual pot hibridar-se i donar descendència viable, malgrat que els mascles siguin estèrils (Liming et al., 1980; Lin et al., 1991). Especiació cromosòmica sense canvi morfològic En animals de poca mobilitat com mamífers, rèptils i sobretot insectes, s’han descrit exemples ben fonamentats d’espècies bessones (sibling species), sense diferències morfològiques però aïllades sexualment (Mayr, 1942, 1963), sovint per reordenacions cromosòmiques estructurals. A títol il·lustratiu, tan sols esmentarem alguns dels exemples més característics d’espècies bessones, ben separades citogenèticament, que refereix sobretot King (1993) en el seu llibre. Els rosegadors del complex Spalax ehrenbergi. Aquest grup de rosegadors subterranis està constituït a Israel per quatre races cromosòmiques, amb 2n = 52, 2n = 54, 2n = 58 i 2n = 60 cromosomes, adaptades a zones climàtiques de major aridesa en sentit nord-sud. Els individus d’aquestes quatre races són indistingibles morfològicament i l’anàlisi electroforètica de vint-i-cinc locus enzimàtics en vint-i-una poblacions de les quatre races demostrà una identitat sorprenent en vint-i-quatre dels vint-i-cinc locus, amb distàncies genètiques baixíssimes, de D = 0,002 a D = 0,007. Per tant, els canvis gènics associats a la divergència secundària entre races cromosòmiques són mínims. L’evolució d’aquestes races s’inicià fa 250.000 anys i l’aïllament reproductor entre les més antigues és més fort que entre les més recents; així succeeix entre les de cinquanta-dos, cinquanta-quatre i cinquanta-vuit cromosomes, en què actuen mecanismes precopuladors, com són els de tipus olfactiu, de vocalització i d’interaccions
162 E. Petitpierre
agressives, a més dels mecanismes cromosòmics d’esterilitat hibrida, els quals, d’altra banda, són els únics que operen entre les races més recents de cinquanta-vuit i seixanta cromosomes. També en clara correspondència amb aquestes dades, l’amplada geogràfica de la zona híbrida i l’eficàcia biològica dels híbrids era menor com més llunyà era l’origen d’aquestes races. Hi ha pocs dubtes que aquestes races representen espècies incipients o com a mínim semiespècies, ja que no han assolit encara un aïllament reproductor complet. Els rèptils del complex Sceloporus ram micus. Les iguanes mexicanes del gènere Sceloporus formen un grup d’alta biodiversitat constituït per unes setanta espècies, de cariotips que tenen un rang de nombres cromosòmics entre 2n = 22 i 2n = 46, i difereixen en canvis robertsonians. L’anàlisi més aprofundida sobre aquestes iguanes s’ha dut a terme en les races cromosòmiques del complex S. grammicus (Hall i Selander, 1973). Aquestes races són de distribució geogràfica parapàtrica, és a dir, contigua, i poden hibridar-se en les zones de contacte geogràfic i produir individus híbrids, els quals han estat objecte d’estudis citogenètics, i també de DNA mitocondrial, DNA ribosòmic i d’al·lozims. Malgrat les discrepàncies en la interpretació d’aquests resultats entre Hall i Selander (1973) d’una part, i Sites (1983) i Sites i Greenbaum (1983) d’una altra, sembla que la formació de races cromosòmiques fou la primera etapa en el procés d’especiació, anterior a la fixació de les petites diferències gèniques, moleculars i morfomètriques que es detectaren també entre aquestes. D’acord amb aquesta hipòtesi, es destaca que l’amplitud de les zones híbrides entre aquestes races cromosòmiques és petita i no supera mai els cinc-cents metres, com pot esperar-se d’híbrids amb un alt grau d’esterilitat (King, 1993). Els coleòpters del complex Chrysolina
aurichalcea. Els coleòpters crisomèlids classificats com a Chrysolina aurichalcea, de distribució paleàrtica disjunta, han demostrat ser molt heterogenis citogenèticament. L’espècie es troba a Europa Central i l’Àsia Oriental, pel nord-est de la Xina, a Corea i al Japó. A Eslovàquia viu una raça cromosòmica de 2n = 40 amb tipus de determinació cromosòmica del sexe Xyp en mascles (Barabás i Bezo, 1978), però al sud d’Alemanya es troba una raça en la qual els mascles tenen 2n = 39 (XO) cromosomes —per tant, sense cromosoma Y (Petitpierre i Dobler, no publicat). A l’Àsia Oriental, Petitpierre (1981) analitzà un individu de Corea amb 2n = 32 cromosomes, i Takenouchi i Shiitsu (1972) observaren al Japó individus mascles amb 2n = 46 (Xyp) cromosomes en poblacions de l’illa d’Hokkaido, mentre que a l’illa de Honshu, Petitpierre (1981) en trobà amb 2n = 45 (XO), i més tard Fujiyama i Okamoto (1989) en trobaren d’altres amb 2n = 31 (XO) i amb 2n = 41 (XO) cromosomes, aquests darrers en localitats geogràfiques distintes però veïnes del sud de l’illa. I malgrat l’heterogeneïtat dels nombres cromosòmics d’aquestes dues races, el contingut de DNA de les espermàtides no mostrà diferències significatives entre les dues classes d’individus (Petitpierre i Juan, 1994). Els mascles o les femelles de cadascuna poden encreuar-se amb individus del sexe oposat de l’altra, però, com es podia esperar, les taxes de supervivència dels híbrids, resultat de les dues classes d’encreuaments recíprocs, foren lleugerament menors que les de la descendència dels encreuaments entre individus de la mateixa raça cromosòmica, i s’obtingué una proporció molt baixa d’individus de la segona generació (≤ 5 %) resultat de l’encreuament entre els híbrids de la primera (Fujiyama, 1989). Aquest mateix autor també observà que es donaven aparellaments selectius més freqüents entre mascles i femelles de la mateixa raça que entre
Evolució cromosòmica i de la mida genòmica en els animals 163
els de races diferents, i que aquestes diferències eren estadísticament significatives (Fujiyama, 1989). Tot i que en el complex C. aurichalcea no s’han aconseguit valors de distàncies genètiques basades en al·lozims o en seqüències nucleotídiques de gens nuclears o mitocondrials, els resultats cariològics i dels encreuaments són prou aclaridors per poder concloure que almenys existeixen quatre espècies bessones dins del complex, amb 2n = 39/40, 2n = 31/32, 2n = 41/42 i 2n = 45/46 cromosomes. POSSIBLE CORRELACIÓ ENTRE EVOLUCIÓ CROMOSÒMICA, ANATÒMICA I MOLECULAR El significat adaptatiu dels complements cromosòmics no és res provat en absolut, encara que alguns autors ho hagin suggerit (Thompson i Sites, 1986; Sites et al., 1988), excepte pel que fa referència a molts casos de polimorfismes cromosòmics, com ja hem comentat per a les inversions paracèntriques de les espècies de Drosophila. Factors externs, com són la grandària petita de població i els aparellaments consanguinis, poden fixar tant les mutacions cromosòmiques com les gèniques que siguin neutres o quasi neutres davant de la selecció natural, però l’evolució cromosòmica i la molecular no s’ha demostrat mai que hagin anat en paral·lel. Així com les pautes de l’evolució molecular de proteïnes i de gens nuclears o citoplasmàtics poden ajustar-se a la cadència de rellotges moleculars i, conseqüentment, en funció del temps transcorregut (Zuckerlandl i Pauling, 1965), no s’ha pogut descobrir res semblant pel que fa a l’evolució cromosòmica. Pel que fa a l’evolució anatòmica i morfològica, en estar sobretot subjecte a la selecció natural i a les restriccions que imposen els processos de desenvolupament embrionari, aquesta obe-
eix a regles que no són idèntiques a les d’aquelles, ni tampoc no es pot parlar d’evolució anatòmica i morfològica neutra. El fet més crucial per a l’evolució organísmica sembla el de l’adquisició d’innovacions estructurals o fisiològiques, com són l’exosquelet dels artròpodes, les ales dels insectes, aus i rates pinyades, els pulmons per als vertebrats terrestres, l’homeotèrmia de les aus i els mamífers, la conquilla dels mol· luscs, etc. Cadascuna d’aquestes innovacions és seguida d’una forta radiació adaptativa en tots els llinatges evolutius implicats. Si pot haver-hi situacions anàlogues en l’evolució cromosòmica, fins avui no s’han demostrat i, ara per ara, no passen de ser pures especulacions. I pel que fa referència a la possible correlació entre l’evolució morfològica i la molecular, n’hi ha prou d’esmentar l’existència de fòssils vivents, animals que no han experimentat a penes cap canvi morfològic en milions d’anys, malgrat que hagin acumulat mutacions en l’evolució molecular d’un ordre de magnitud semblant al d’altres llinatges, la qual cosa fa ben palès el desacoblament entre ambdós processos. MIDA GENÒMICA La mida genòmica o contingut de DNA per nucli és un paràmetre biològic que és quasi sempre constant i característic de cada espècie, i serveix, igual que el cariotip, per a la identificació citogenètica. La gran majoria de les determinacions de mida genòmica s’han realitzat per microdensitometria mitjançant la tinció de Feulgen, però recentment també per citometria de flux en nuclis tenyits amb fluorocroms. Les mesures se solen donar en picograms (pg) (1 pg = 10 –12 g), o bé en nombre de parells de nucleòtids, i poden referir-se tant a cèl·lules haploides com a diploides.
164 E. Petitpierre
En el treball pioner de Mirsky i Ris (1951) sobre seixanta espècies d’animals es va posar de manifest que els genomes dels animals són de mides extraordinàriament diferents, i també que, com assenyalà Hinegardner (1976): a) hi havia un augment de la mida genòmica des dels invertebrats inferiors, esponges i cnidaris, fins als invertebrats superiors, b) organismes relacionats, tals com els membres d’una mateixa família d’animals, tenien valors similars de mides, i c) l’evolució dels vertebrats terrestres va anar acompanyada de reduccions en aquesta mida. Després d’haver-se ampliat les anàlisis de mides genòmiques en molts altres grups d’animals, les conclusions de Mirsky i Ris (1951) i de Hinegardner (1976) s’han de matisar. En primer terme es demostrà que les espècies estretament emparentades, com són les espècies congenèriques i fins i tot les espècies bessones, no havien de presentar valors similars de continguts de DNA, ja que podien diferir molt en aquest paràmetre. Això plantejava un vertader problema, que batejaren amb el nom de paradoxa del valor C, perquè les espècies veïnes calia esperar que tinguessin un nombre molt semblant de gens i que la majoria fossin compartits. Si la mida genòmica reflectia en relació directa el nombre de gens, aquelles diferències eren inexplicables. En segon terme, estudis bioquímics acurats de genomes eucariotes evidenciaren la presència de distintes classes de DNA, DNA de còpia única i DNA repetitius, una gran part d’aquests darrers sense cap funció genètica reconeguda. Així doncs, no podia establir-se una correspondència entre el nombre de gens i la mida genòmica, i l’única correlació aproximada que podia postular-se era entre el valor mínim de mida genòmica per a cada grup d’animals respecte al presumpte nombre de gens i també respecte al seu grau de
complexitat organísmica, tot i així amb bastants excepcions (Cavalier-Smith, 1985; John i Miklos, 1988; Lewin, 1994). Especialització per reducció en la mida genòmica Hinegardner i Rosen (1972) i Hinegardner (1976) proposaren per primera vegada que l’especialització evolutiva dels peixos teleostis es produïa amb pèrdua de material genètic, perquè alguns gens responsables de característiques generals comunes als peixos «generalistes» no eren necessaris quan les espècies més recents, de morfologies més allunyades al tipus estàndard, colonitzaven nínxols ecològics molt particulars, com podien ser els fons arenosos en els quals s’enterraven, o els fons abissals, on mancava completament la llum. Aquesta hipòtesi no ha estat mai provada ni tampoc no té avui cap sentit formularla, quan s’ha demostrat que els gens en els genomes dels eucariotes només constitueixen una part molt petita del total del DNA nuclear. Contràriament, els efectes nucleotípics de la mida genòmica (Bennettt, 1972; Cavalier-Smith, 1978), aquells dependents de la massa de DNA nuclear i no dels gens continguts, són molt més ajustats a les dades empíriques que se’n poden derivar. Així, la mida genòmica té una relació directa amb el volum o àrea del nucli, però també amb el temps necessari per replicar el DNA, dividir la cèl·lula per mitosi o per meiosi i realitzar les activitats metabòliques comunes a tots els tipus cel·lulars (Gregory, 2005). Contràriament, s’han publicat dades que correlacionen tant positivament com negativament la mida genòmica i el nombre de cromosomes, segons els diversos grups d’animals analitzats. A més d’aquests efectes a escala cel·lular, també se n’han suggerit d’altres a l’escala de l’organisme o de la
Evolució cromosòmica i de la mida genòmica en els animals 165
fisiologia general, que poden derivar-se indirectament d’aquells, com són la durada del desenvolupament, la grandària corporal, la taxa metabòlica i la longevitat, però que, a diferència dels precedents, han estat i són objecte de polèmica (John i Miklos, 1988; Gregory, 2005). Estudis moleculars detallats de l’estructura genòmica en espècies de Drosophila han permès de substanciar els processos d’especialització associats al decreixement en la mida del genoma. Tant en D. virilis com, sobretot, en D. melanogaster, s’han observat taxes altes de delecions en seqüències no funcionals de DNA, siguin de còpia única o repetitives, eucromàtiques o heterocromàtiques, transposables o no transposables (Petrov et al., 1996; Petrov i Hartl, 1998; Petrov, 2002). I per acabar, aquest decreixement de la mida genòmica per delecions en Drosophila és quaranta vegades major que en els grills del gènere Laupala, amb diferències altament significatives, d’un gènere a l’altre, en la grandària mitjana de les delecions i de les insercions, la vida mitjana dels pseudogens i en el quocient entre les delecions i les substitucions nucleotídiques (Petrov et al., 2000). Bachmann et al. (1972) remarcaren que la mida genòmica de les aus és aproximadament un 50 % més petita que la dels rèptils i la dels mamífers, la qual cosa pot deure’s a la menor quantitat de DNA repetitiu que presenten aquelles (Rosen et al., 1973). Anàlisis posteriors més extenses i acurades han determinat que el valor mitjà (2C) de mida genòmica dels nuclis de cent seixanta-cinc espècies d’aus és de 2,82 pg, mentre que el dels mamífers és de ≈ 8 pg (Tiersch i Wachtel, 1991), és a dir, menys, del 50 % indicat per Bachmann et al. (1972). Cercant possibles efectes nucleotípics d’aquestes dades de mides genòmiques en les aus, Hughes i Hughes (1995) suggeriren que els genomes petits facilitaven la capacitat
per volar intrínseca a la gran majoria de les aus i que aquesta diferència era deguda tant a la pèrdua de DNA repetitiu intercalar com a la grandària dels introns, quan es comparaven trenta-un gens del pollastre amb els seus homòlegs d’humans. Poc després, Hughes (1999) aportà proves indicatives d’una correlació inversa entre la capacitat de vol en les aus i la seva mida genòmica, de manera que aus no voladores com l’emú i l’estruç tenien els continguts de DNA més alts, i les espècies de gran capacitat per volar, com les orenetes i falciots, els més baixos, amb les aus de vol feble i moderat en posicions intermèdies. Queda per determinar si les reduccions en la mida genòmica van ser anteriors o posteriors a l’adquisició de la capacitat de volar de les aus, una qüestió encara oberta, perquè fins ara hi ha poquíssimes proves i aquestes, malauradament, són contradictòries (Gregory, 2005). BIBLIOGRAFIA Arnason, U. (1972). «The role of chromosomal rearrangement in mammalian speciation with special reference to Cetacea and Pinnipeda». Hereditas, 70: 113-118. Bachmann, K.; Goin, O. B.; Goin, C. J. (1972). «Nuclear DNA amounts in vertebrates». A: Smith, H. H. [ed.]. Evolution of genetic systems (Brookhaven Symposia in Biology. Number 23). Nova York: Gordon and Breach, 419-451. Balmus, G.; Trifonov, V. A.; Biltueva, L. S.; O’Brien, P. C.; Alkalaeva, E. S.; Fu, B.; Skidmore, J. A.; Allen, T.; Graphodatsky, A. S.; Yang, F.; Ferguson-Smith, M. A. (2007). «Cross-species chromosome painting among camel, cattle, pig and human: further insights into the putative Cetartiodactyla ancestral karyotype». Chromosome Res., 15: 499-514. Barabás, L.; Bezo, M. (1978). «Chromosome count in some representatives of the family Chrysomelidae (Coleoptera)». Biologia (Bratislava), 33: 621-625. Bennett, M. D. (1972). «Nuclear DNA content and minimum generation time in herbaceous plants». Proc. R. Soc. Lond. B, 181: 109-135. Bush, G. L.; Case, S. M.; Wilson, A. C.; Patton, J. L.
166 E. Petitpierre
(1977). «Rapid speciation and chromosomal evolution in mammals». Proc. Natl. Acad. Sci. USA, 74: 3942-3946. Capanna, E.; Civitelli, M. V.; Cristaldi, M. (1977). «Chromosomal rearrangements, reproductive isolation and speciation in mammals. The case of Mus musculus». Boll. Zool., 44: 213-246. Carson, H. L.; Clayton, F. E.; Stalker, H. D. (1967). «Karyotypic stability and speciation in Hawaiian Drosophila». Proc. Natl. Acad. Sci. USA, 57: 12801285. Cavalier-Smith, T. (1978). «Nuclear volume control by nucleoskeletal DNA, selection for cell volume and cell growth rate, and the solution of the DNA C-value paradox». J. Cell Sci., 34: 247-278. — [ed.] (1985). The evolution of genome size. Chichester: John Wiley & Sons. Chiarelli, A. B.; Capanna, E. [ed.] (1973). Cytotaxonomy and vertebrate evolution. Londres: Academic Press. Dobzhansky, T. (1951). Genetics and the origin of species, 3a ed. Nova York: Columbia University Press. Dobzhansky, T.; Ayala, F. J.; Stebbins, G. L.; Valentine, J. W. (1980). Evolución. Barcelona: Omega. Fujiyama, S. (1989). «Species problems in Chrysolina aurichalcea (Mannerheim) with special reference to chromosome numbers (Chrysomelidae)». Entomography, 6: 443-452. Fujiyama, S.; Okomoto, K. (1989). «Two new karyotypes in the Chrysolina aurichalcea (Mannerheim) complex (Coleoptera: Chrysomelidae), with their relationship and distribution in the Japanese archipelago». Appl. Entomol. Zool., 31: 203-209. Futuyma, D. J. (1998). Evolutionary biology, 3a ed. Sunderland: Sinauer Assoc. Publ. Gregory, T. R. (2005). «Genome size evolution in animals». A: Gregory, T. R. [ed.]. The evolution of the genome. Àmsterdam: Elsevier Acad. Press, 3-87. Gropp, A.; Tettenborn, V.; Lehman, E. von (1970). «Chromosomenvariationen vom Robertson’schen typus bei der tabakmaus M. poschiavinus, und ihren hybriden mit der laboratoriumsmaus». Cytogenetics, 9: 9-23. Hall, W. P.; Selander, R. K. (1973). «Hybridization of karyotypically differentiated populations in Sceloporus grammicus complex (Iguanidae)». Evolution, 27: 226-242. Hinegardner, R. (1976). «Evolution of genome size». A: Ayala, F. J. [ed.]. Molecular evolution. Sunderland: Sinauer Ass., 179-199. Hinegardner, R.; Rosen, D. E. (1972). «Cellular DNA content and the evolution of teleostean fishes». Am. Nat., 106: 621-644.
Hughes, A. L. (1999). «Adaptive evolution of genes and genomes». Nova York: Oxford University Press. Hughes, A. L.; Hughes, M. K. (1995). «Small genomes for better flyiers». Nature, 377: 391. Imai, H. T. (1986). «Modes of species differentiation and karyotype alteration in ants and mammals». A: Iwatsuki, K.; Raven, P. H.; Bock, W. J. [ed.] Modern aspects of species. Tòquio: University of Tokyo Press, 87-105. John, B.; Miklos, G. L. G. (1988). The eukaryoye genome in development and evolution. Londres: Allen & Unwin. King, M. (1993). Species evolution: the role of chromosomal change. Cambridge: Cambridge University Press. Lande, R. (1979). «Effective deme sizes during longterm evolution estimated from rates of chromosomal rearrangement». Evolution, 33: 234-251. Larson, A.; Prager, E. M.; Wilson, A. C. (1984). «Chromosomal evolution, speciation and morphological change in vertebrates: the role of social behaviour». Chromosomes Today, 8: 215-228. Lewin, B. (1994). Genes V. Oxford: Oxford University Press. Lewontin, R. C. (1974). The genetic basis of evolutionary change. Nova York: Columbia University Press. Liming, S.; Ying Ying, Y.; Xing Sheng, D. (1980). «Comparative cytogenetic studies on the red muntjac, Chinese muntjac and their F1 hybrids». Cytogenet. Cell. Genet., 26: 22-27. Lin, C. C.; Sasi, R.; Fan, Y. S.; Chen, Z. Q. (1991). «New evidence for tandem chromosome fusions in the karyotype evolution of Asian muntjacs». Chromosoma, 101: 19-24. Maddison, D. R. (1985). «Chromosomal diversity and evolution in the ground beetle genus Bembidion and related taxa (Coleoptera; Carabidae; Trechinae)». Genetica, 66: 93-114. Mayr, E. (1942). Systematics and the origin of species. Nova York: Columbia University Press. — (1963). Especies animales y evolución. Barcelona: Universidad de Chile, Ariel. Mirsky, A. E.; Ris, H. (1951). «The deoxyribonucleic acid content of animal cells and its evolutionary significance». J. General Physiol., 34: 451-462. Navarro, A.; Barton, N. H. (2003). «Chromosomal speciation and molecular divergence-accelerated evolution in rearranged chromosomes». Science, 300: 321-324. Naveira, H.; Fontdevila, A. (1985). «The evolutionary history of Drosophila buzzattii. IX. High frequencies of new chromosome rearrangements induced by introgressive hybridization». Chromosoma, 91: 87-94.
Evolució cromosòmica i de la mida genòmica en els animals 167
Nei, M. (1975). Molecular population genetics and evolution. Àmsterdam: North Holland. Ohno, S. (1970). Evolution by gene duplication. Nova York: Springer-Verlag. Petitpierre, E. (1981). «New data on the cytology of Chrysolina (Mots.) and Oreina Chevr. (Coleoptera, Chrysomelidae)». Genetica, 54: 265-272. Petitpierre, E.; Juan, C. (1994). «Genome size, chromosomes and egg-chorion ultrastructure in the evolution of Chrysomelinae». A: Jolivet, P. H.; Cox, M. L.; Petitpierre E. [ed.]. Novel aspects of the biology of Chrysomelidae. Dordrecht: Kluwer Acad. Publ., 213-225. Petrov, D. A. (2002). «DNA loss and evolution of genome size in Drosophila». Genetica, 115: 81-91. Petrov, D. A.; Hartl, D. L. (1998). «High rate of DNA loss in the Drosophila melanogaster and Drosophila virilis species groups». Mol. Biol. Evol., 15: 293-302. Petrov, D. A.; Lozovkaya, E. R.; Hartl, D. L. (1996). «High intrinsic rate of DNA loss in Drosophila». Nature, 384: 346-349. Petrov, D. A.; Sangster, T. A. ; Johnston, J. S.; Hartl, D. L.; Shawn, K. L. (2000). «Evidence for DNA loss as a determinant of genome size». Science, 287: 1060-1062. Prevosti, A. (1979). «Polimorfismo cromosómico y evolución». A: Evolución (Libros de Investigación y Ciencia). Barcelona: Labor, 85-100. Prevosti, A.; Ribó, G.; Serra, L.; Aguadé, M.; Balañá, J.; Monclús, M.; Mestres, F. (1988). «Colonization of America by Drosophila subobscura: experiment in natural populations that support the adaptive role of chromosomal-inversion polymorphism». Proc. Natl. Acad. Sci. USA, 85: 5597-5600. Prevosti, A.; Serra, L.; Segarra, C.; Aguadé, M.; Ribó, G.; Monclús, M. (1990). «Clines of chromosomal arrangements of Drosophila subobscura in South America evolve closer to Old World patterns». Evolution, 44: 218-221. Richard, F.; Lombard, M.; Dutrillaux, B. (2003). «Reconstruction of the ancestral karyotype of eutherian mammals». Chromosome Res., 11: 605-615. Rosen, J. M.; Liarkos, C. D.; O’My, B. W. (1973). «Effect of estrogen on gene expression in chick oviduct. 1. Deoxyribonucleic-deoxyribonucleic acid renaturation studies». Biochemistry, 12: 2803-2809. Serra, L. (2002). «Colonización de América por Drosophila subobscura». Mem. R. Acad. Cien. Artes Barcelona, 9: 147-191.
Sites, J. W. (1983). «Chromosome evolution in the iguanid lizard Sceloporus grammicus. I. Chromosome polymorphisms». Evolution, 37: 38-53. Sites, J. W.; Greenbaum, I. F. (1983). «Chromosome evolution in the iguanid lizard Sceloporus grammicus. II. Allozyme variation». Evolution, 37: 54-65. Sites, J. W.; Chesser, R. K.; Baker, R. J. (1988). «Population genetic structure and the fixation of chromosomal rearrangements in Sceloporus grammicus (Sauria: Iguanidae): A computer simulation study». Copeia, 4: 1045-1055. Smith, S. G.; Virkki, N. (1978). Coleoptera. Animal cytogenetics Vol. 3: Insecta. Berlín: Gebrüder Borntraeger. Sumner, E. (2003). Chromosomes: organization and function. Blackwell. Takenouchi, Y.; Shiitsu, T. (1972). «A survey of the chromosomes in eleven species of chrysomelid beetles (Coleoptera)». Kontyû, 40: 297-302. Thompson, J. A.; Sites, J. W. (1986). «Comparison of population structure in chromosomally polytypic and monotypic species of Sceloporus (Sauria: Iguanidae) in relation to chromosomally-mediated speciation». Evolution, 40: 303-314. Tiersch, T. R.; Watchel, S. S. (1991). «On the evolution of genome size in birds». J. Hered., 82: 363-368. White, M. J. D. (1954). Animal cytology and evolution, 2a ed. Cambridge: Cambridge University Press. — (1973). Animal cytology and evolution, 3a ed. Cambridge: Cambridge University Press. — (1978). Modes of Speciation. San Francisco: W. H. Freeman. Wilson, A. C.; Sarich, V. M.; Maxson, L. R. (1974). «The importance of gene rearrangement in evolution: evidence from studies on rates of chromosomal, protein and anatomical evolution». Proc. Natl. Acad. Sci. USA, 71: 3028-3030. Wilson, A. C.; Bush, G. L.; Case, S. M.; King, M. C. (1975). «Social structuring of mammalian populations and the rate of chromosomal evolution». Proc. Natl. Acad. Sci. USA, 72: 5061-5065. Yunis, J. J.; Prakash, O. (1982). «The origin of man: a chromosomal pictorial legacy». Science, 215: 15251530. Zuckerlandl, E.; Pauling, L. (1965). «Evolutionary divergence and convergence of proteins». A: Bryson, V.; Vogel, H. J. [ed.]. Evolving genes and proteins. Nova York: Academic Press, 7-166.
DOI: 10.2436/20.1501.02.83
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 169-179
DOMESTICACIÓ EN ANIMALS I EVOLUCIÓ Miguel Pérez-Enciso Institut Català de Recerca i Estudis Avançats, Centre de Recerca en Agrogenòmica i Facultat de Veterinària, Universitat Autònoma de Barcelona. Adreça per a la correspondència: Miguel Pérez-Enciso. Departament de Ciència Animal i dels Aliments, Universitat Autònoma de Barcelona. Campus de Bellaterra, edifici 5. 08193 Bellaterra. Adreça electrònica: miguel.perez@uab.cat. RESUM La domesticació és simplement evolució, encara que a una velocitat elevada produïda per la selecció artificial i l’adaptació de l’espècie al nou ambient en contacte amb l’home. Encara que alguns estudis tendeixen a enfocar la domesticació com una relació d’aprofitament, de parasitisme, la domesticació és sobretot simbiosi i ha produït un benefici mutu en els humans i en l’espècie domèstica. El procés de domesticació ha estat, en gairebé totes les espècies estudiades, molt més complex del que es pensava, i no solament ha ocorregut en múltiples ocasions i llocs, sinó que també ha estat un procés gradual i sovint d’anada i tornada. Com a conseqüència d’això, no sempre és fàcil interpretar els resultats experimentals sobre variabilitat genètica produïts a gran escala per les noves tècniques genòmiques. Si alguna cosa sembla certa és que la domesticació no ha fet desaparèixer la variació genètica, i sovint les races domèstiques són molt més variables del que podíem sospitar. Paraules clau: domesticació, ramaderia, genòmica, variabilitat genètica. ANIMAL DOMESTICATION AND EVOLUTION SUMMARY Domestication is but evolution, only at high pace as a result of artificial selection and adaptation to the new human mediated environment. Although domestication has been considered traditionally as animal exploitation, it has benefited both human and animals, it is symbiosis rather than parasitism. The domestication process is much more complex than anticipated, it has occurred in different locations at several times, it has been a gradual process rather than a clear cut event. As a result, it is not necessarily easy to interpret results that are being produced by large scale modern genomics. One thing is undisput-
170 M. Pérez-Enciso
ed: domestication has not wiped out genetic variability, domestic breeds seem to be much more variable than expected a priori. Key words: domestication, livestock, genomics, genetic variability.
INTRODUCCIÓ Charles Darwin va ser un agut observador, i no se li va escapar la similitud que hi ha entre la selecció artificial, és a dir, l’exercida per l’home per modificar les races d’animals o plantes domèstics, i la selecció natural, responsable de l’adaptació i evolució de les espècies. Si bé avui dia sabem que la selecció no és l’única força evolutiva important, Darwin va saber veure que els mecanismes responsables de l’adaptació al medi de les espècies naturals són els mateixos que actuen quan els humans manipulen, mitjançant una criança selectiva, les espècies domèstiques per al seu benefici propi. La majoria de les observacions de Darwin referents a això estan recollides en l’obra seva La variació d’animals i plantes sota la domesticació, publicada el 1868. Encara que aquesta obra va ser publicada nou anys després de L’origen, l’interès de Darwin per la criança d’animals i plantes domèstics es remunta molts anys enrere. Ja el 1839 havia enviat un qüestionari als ramaders perquè li informessin sobre aspectes relacionats amb el millorament i la creació de noves races. Es va interessar particularment per les diferents races de coloms. Sovint, una determinada raça o línia animal desapareix però, Darwin es pregunta, com va sorgir aquesta raça? Darwin era ben conscient que aquesta pregunta era la veritablement important per entendre l’origen de les espècies. La domesticació d’animals i plantes va suposar un pas de gegant en l’evolució humana en reduir la dependència de recursos naturals per a l’alimentació, que fins llavors depenien de la caça i la recol·lecció. Com a con-
seqüència, la grandària de la població humana va augmentar i va afavorir la creació d’assentaments més o menys estables en el que serien els embrions de les ciutats. Les ciutats, al seu torn, van permetre l’aparició de societats humanes cada vegada més complexes en la seva organització. Tot això va ocórrer durant el neolític i principalment en l’Orient Pròxim, des de fa aproximadament deu mil anys. És difícil, com veiem, exagerar l’impacte de la domesticació en la història de la nostra espècie. La domesticació és un fenomen històric estudiat tradicionalment per arqueozoòlegs a través de l’anàlisi dels nombrosos jaciments arqueològics amb assentaments humans. Però, en ser també un procés que va actuar sobre éssers vius, va deixar una petjada indeleble en el genoma de les poblacions domèstiques que subsisteixen fins als nostres dies. Per tant, la domesticació es pot estudiar de manera complementària analitzant la variabilitat genòmica de les races domèstiques modernes. Si, a més, l’avantpassat no domesticat encara existeix, com en el cas del gos (llop) o del porc (senglar), la comparança genètica de les poblacions salvatges i domèstiques ens podrà informar sobre els efectes de la domesticació en el genoma amb major precisió. Una altra font d’informació és el DNA antic, és a dir, el DNA degradat present en minúscules proporcions en restes antigues, de fins a diversos milers d’anys. Ja que la domesticació és un fenomen recent en termes evolutius (uns pocs milers d’anys) encara es pot extreure DNA de les restes fòssils d’aquesta edat i es pot analitzar mitjançant tècniques especials. Aquestes tècniques, per exemple, han per-
Domesticació en animals i evolució 171
mès determinar que els porcs domesticats a l’Orient Pròxim van influir genèticament en les poblacions domèstiques europees, és a dir, van ser transportats pels colonitzadors en les seves migracions des de l’Orient Pròxim. En aquest capítol ens centrarem en els aspectes genètics de la domesticació i no tant en els arqueològics. Lògicament, ambdós enfocaments són complementaris i útils, i és només la ignorància de l’autor el que fa que aquesta discussió sigui més restringida del que és desitjable. DOMESTICA’M El Petit Príncep, en el famós llibre d’Antoine de Saint Exupéry, diu a la guineu: —Vine a jugar amb mi. —No puc —replica aquest—, no estic domesticat. El Petit Príncep està desconcertat: —Què significa domesticar? —Domesticar significa ‘crear llaços’, i per a mi no ets més que un nen semblant a cent mil nens, i no et necessito, i tu tampoc no em necessites. No sóc per a tu més que una guineu semblant a cent mil guineus. Però, si em domestiques, tindrem necessitat l’un de l’altre. Seràs per a mi únic en el món. Seré per a tu única en el món. A més de resultar poètic, el Petit Príncep ens recorda —sense voler-ho i potser sense saber-ho— alguns aspectes clau de la domesticació. El primer és que la domesticació és una relació simbiòtica i no de parasitisme, de cooperació i no d’explotació. Els estudis tendeixen a enfocar la domesticació com un procés d’aprofitament per part dels humans de determinades espècies originalment salvatges. L’espècie humana s’ha beneficiat sens dubte de la domesticació, però també ha protegit les espècies domesticades, n’ha evitat l’extinció i els ha procurat un ambient favorable, protegint-
los de malalties i afavorint la seva multiplicació. Per recordar la teoria del gen egoista de Richard Dawkins, l’home ha facilitat la replicació dels gens dels animals i plantes domèstics. Molts dels avantpassats dels animals salvatges s’han extingit, com el cavall de Przewalski, antecessor del cavall, o el Bos primigenius, que va donar origen al boví, per citar diversos exemples. El gos està en perill d’extinció molt menor que el llop, sense cap dubte. Més encara, en el cas del gat, se suposa que aquest es va autodomesticar (Driscoll et al., 2007), va trobar en l’hàbitat humà un bon entorn amb aliment i als humans els va beneficiar que el gat els protegís de determinades plagues, com els rosegadors. És fàcil pensar que en el cas del porc va poder passar una cosa similar. Hi ha un altre aspecte més subtil en el discurs del Petit Príncep, i és que només uns pocs dels individus de l’espècie són domesticats. La domesticació necessàriament implica una reducció en el nombre d’animals domèstics en relació amb els salvatges. Aquest procés s’anomena coll d’ampolla, i té conseqüències importants. La primera és una pèrdua de variabilitat genètica, ja que aquesta és directament proporcional al nombre de reproductors en una població. La segona conseqüència és un augment del fenomen conegut com deriva genètica, és a dir, de l’atzar. L’atzar té una influència en els canvis genètics, que és major com més petit és el cens de la població. Hi ha dues forces evolutives principals que governen la destinació genètica de les poblacions: la selecció i la deriva genètica. La selecció permet que una determinada variant genètica s’implanti si té un efecte beneficiós. Per exemple, un gen que confereixi resistència a un paràsit s’estendrà en poblacions que sofreixen aquest paràsit. Però aquest procés és estocàstic, i pot ser que per atzar això no sempre ocorri. Per utilitzar un símil
172 M. Pérez-Enciso
popular, l’evolució és com un partit de futbol: s’espera que guanyi el millor equip però, a causa de circumstàncies alienes a la qualitat dels equips (els partits no duren indefinidament, l’àrbitre o les lesions dels jugadors), això no sempre ocorre. Igual que en el futbol, la salsa de l’evolució està en la deriva genètica: si sempre guanyés el millor equip, el futbol no seria ni la meitat de popular del que és. A la llarga, sí que és veritat, sol guanyar el millor. És per això que normalment les poblacions estan adaptades al mitjà. Si tornem al tema de la domesticació, les vaques lleteres produeixen molta més llet que les vaques de carn perquè han estat sotmeses a un intens procés de selecció durant molt temps perquè funcionin així. Potser l’experiment més interessant sobre domesticació és el que va realitzar l’investigador soviètic Dmitry Belyaev en plena guerra freda. Belyaev va seleccionar una població de guineu argentat Vulpes vulpes (espècie no domesticada) per disminuirne l’agressivitat. La hipòtesi de Belyaev era que els principals canvis que ocorren durant la domesticació estan relacionats amb el comportament, amb la docilitat, concretament. La resta de diferències entre animals salvatges i domèstics ocorrerien com a conseqüència indirecta dels canvis en comportament. Belyaev va començar el seu experiment el 1959 i el va continuar fins a la seva mort el 1985, quan la seva deixeble Trut va prendre el testimoni. Començant amb trenta mascles i cent femelles, cada generació es van seleccionar el 5 % dels mascles i el 20 % de les femelles més mansos, aproximadament. Al final de més de quaranta generacions de selecció, es van obtenir uns animals absolutament distints dels salvatges: eren dòcils, buscaven el contacte humà, llepaven les mans dels seus amos... Quan algun dels animals escapava de les gàbies, sempre hi tornava, segurament incapaç de sobreviure en el medi natural. A més, també es van
observar altres característiques, com orelles abaixades, cua curta, pèl arrissat o canvis de color en el pèl, a més d’un cicle reproductiu menys estacional. Tots aquests canvis s’han observat en moltes altres espècies domèstiques. Des d’un punt de vista fisiològic, la majoria d’aquests canvis es poden explicar per un procés de neotènia, és a dir, per un procés mitjançant el qual els adults conserven trets juvenils. Aquesta observació és molt rellevant, i implicaria que la domesticació ha produït canvis principalment en els gens que afecten el desenvolupament de l’animal. El lector interessat en més detalls sobre aquest fascinant experiment pot consultar l’article de Lyudmila Trut d’American Scientist (http://reactor-core.org/tamingfoxes.html). DE LA VACA A L’ABELLA, PASSANT PER L’OVELLA Però, independentment dels canvis fisiològics i de comportament en les espècies domèstiques, ens interessa reconstruir la història de la domesticació a partir de la informació genètica. Aquesta àrea d’investigació és relativament recent i ens queda molt treball per fer encara, però ja comencem a tenir una idea relativament coherent dels diversos processos de domesticació. Una de les espècies que ha estat millor estudiada és la bovina. El bestiar boví actual consta de dues subespècies, B. taurus taurus (toro) i B. taurus indicus (zebú). Ambdues subespècies es devien originar a partir del B. primigenius (Bruford et al., 2003). El zebú es localitza principalment en el subcontinent indi i l’est d’Àfrica, mentre que les races taurines es troben per tot Europa i el nord i oest d’Àfrica. A Amèrica trobem zebú a les zones tropicals (centre i nord del Brasil, Amèrica Central) i toros a les temperades (centre i nord dels EUA, sud del Brasil
Domesticació en animals i evolució 173
i Argentina). A més, hi ha multitud de races híbrides entre zebú i toro que s’exploten al Brasil i la zona del golf de Mèxic. Encara que inicialment es pensava que va haverhi un sol procés de domesticació que donaria origen a totes les races de boví actuals, tant de zebú com de toros, els primers estudis que es van fer de DNA mitocondrial van mostrar que les dues subespècies s’havien separat fa diversos centenars de milers d’anys, és a dir, molt abans de qualsevol domesticació. Per tant, les dues subespècies es van domesticar de manera independent. Diverses dades arqueològiques indiquen que el zebú es va domesticar a la regió de Balutxistán (avui Pakistan) fa uns deu mil anys, es va introduir posteriorment a l’Índia i, més recentment —fa tres mil anys, aproximadament—, a l’Àfrica. En canvi, el toro es va domesticar inicialment a l’Orient Pròxim, i es va expandir cap a Europa i Àfrica. Però aquest quadre es fa cada vegada més complex a mesura que s’amplia amb més dades. Per exemple, el zebú africà presenta predominantment DNA mitocondrial taurí, malgrat que es pensava que el seu origen era l’Índia. També, el seu cromosoma Y és el del zebú. Ja que el DNA mitocondrial s’hereta per via materna exclusivament, això indicaria que toros amb trets de zebú es devien creuar repetidament amb vaques africanes amb un origen taurí. A Europa, l’evidència inicial suggeria que va haverhi dues migracions de bestiar boví taurí des de l’Orient Pròxim. Una ruta va seguir cap al nord d’Europa a través dels Balcans, l’anomenada ruta del Danubi. L’altra ruta va prendre el Mediterrani com a eix d’expansió, des de Grècia fins a Espanya, però també pel nord d’Àfrica. Segons aquesta hipòtesi inicial, l’únic procés de domesticació es va produir a l’Orient Pròxim. No obstant això, estudis més recents amb DNA antic han demostrat que va haver-hi diverses domesticacions locals a Europa i que els uros lo-
cals (B. primigenius) es van encreuar amb el bestiar provinent de l’Orient Pròxim. També se sap que el bestiar nord-africà va influir genèticament en el de la península Ibèrica. Així mateix, també va haver-hi una altra introgressió de zebús en el boví de l’Orient Pròxim. Aquesta zona va ser un centre principal de domesticació durant el neolític, encara que no l’únic, com hem vist. A més del boví, també es van domesticar en aquesta regió l’ovella, la cabra o el gat (Bruford et al., 2003; Driscoll et al., 2007; Fernandez et al., 2006; Pedrosa et al., 2005). En general, en totes les espècies analitzades se sap que va haver-hi més d’un esdeveniment de domesticació, ja que cap espècie domèstica actual és tan uniforme genèticament per pensar que tots els individus de l’espècie provenen d’una sola població. Lògicament, això complica enormement descobrir quina ha estat la història en cada cas. Normalment l’evidència arqueològica és molt escassa i la genètica és compatible amb diverses hipòtesis alternatives. Fins i tot una espècie domèstica pot tenir com a origen diverses espècies salvatges. Recentment científics suecs han demostrat que la gallina domèstica té en realitat un origen híbrid. Encara que fins llavors es pensava que l’avantpassat salvatge era el faisà vermell (Gallus gallus), diversos estudis amb els gens responsables de la coloració de la pell demostren que almenys algun d’aquests gens provenen de l’espècie propera G. sonneratii o faisà gris (Eriksson et al., 2008). No tots els animals domèstics són vertebrats superiors. L’abella, Apis mellifera, també va ser domesticada fa almenys set mil anys. Aquest insecte és útil per a la pol·linització de les plantes conreades, però també per obtenir mel i cera, productes molt importants des de l’antiguitat. El gènere Apis comprèn deu espècies, de les quals nou viuen només a l’Àsia. Per això es pensava que l’abella comuna s’havia domesticat
174 M. Pérez-Enciso
originalment a l’Àsia i que, des d’allà, s’havia estès cap a Europa i a la resta del món, és a dir, Àfrica i Amèrica. No obstant això, la seqüenciació del genoma, publicat l’octubre de 2006 a la revista Science, i la identificació de polimorfismes, van permetre determinar que l’abella es va originar a l’Àfrica (Whitfield et al., 2006). Des de l’Àfrica va haver-hi almenys dues migracions a Europa, una per l’oest (península Ibèrica, França), i altra més a l’est i el nord d’Europa. Curiosament, les dues estirps europees són de les més distintes que hi ha dins de l’espècie. Des d’Europa, es creu que l’espècie es va introduir a l’Àsia en una o més onades migratòries. Al seu torn, l’abella es va introduir des d’Europa a tot Amèrica seguint els colonitzadors. Ja en el segle xx, l’abella africana es va introduir al Brasil. Aquesta varietat, en ser més agressiva que les europees, està colonitzant la resta d’Amèrica, tant cap al sud (Argentina) com cap al nord (EUA). Un esquema d’aquest procés es pot veure a la figura 1. Com veiem, no es pot dir que la domesticació de l’abella hagi estat un procés senzill. EL GOS, EL MILLOR AMIC DE LA GENÒMICA El gos (Canis familiaris) mereix un capítol a part en la història de la domesticació. És amb seguretat el vertebrat amb major variabilitat. Hi ha més de vuit-centes races canines registrades, que són extremadament diverses: pensem per exemple en la diferència de grandària que hi ha entre un chihuahua i un gran danès, fet que il·lustra a la perfecció la plasticitat dels gens implicats en el desenvolupament. Això confirma d’altra banda que la domesticació ha incidit principalment en els gens del desenvolupament, tal com comentàvem més amunt. Però, a més, avui sabem que el gos va ser la primera es-
pècie a ser domesticada, fa uns catorze mil anys, tres mil abans que altres espècies com el boví. Es pensa que la domesticació del gos va ocórrer a l’Àsia però, de nou, no va ocórrer una sola vegada, sinó que els gossos actuals descendeixen de diverses poblacions de llops independents (Vila et al., 1997; Wayne i Ostrander, 2007). Un dels aspectes més curiosos de la història del gos és que els pobladors originals d’Amèrica, que van entrar al Nou Món per l’estret de Bering procedents d’Àsia, no van domesticar el coiot o el llop americà, sinó que hi van dur els seus gossos ja domesticats. I això va ocórrer tant a l’Amèrica del Nord com a la del Sud, on estudis de mòmies de gos antigues trobades als Andes han mostrat que el DNA mitocondrial d’aquests gossos era el mateix que el dels gossos asiàtics, que és distint del dels coiots i llops americans. Per als humans primitius el gos va ser tan valuós que els va acompanyar en viatges de milers i milers de quilòmetres des de fa milers d’anys. El gos és l’espècie domèstica del genoma de la qual tenim un coneixement més profund. La seqüència completa es va publicar el 2005 a la revista Nature (LindbladToh et al., 2005). Hi ha diverses raons per estudiar el genoma del gos, i una és que el gos és un model excel·lent per a malalties humanes. El gos no solament pateix malalties que són etiològicament i fisiològicament les mateixes que les humanes (càncer, osteopaties, etc.) sinó que, a més, hi ha una gran variabilitat entre les diferents races. Hi ha races que sofreixen una determinada malaltia i races en les quals mai no apareix. Per tant, la comparança entre els genomes de diverses races sensibles i resistents permetrà descobrir quina és la base genètica de la malaltia en qüestió. Un segon avantatge del gos és la seva gran variabilitat fenotípica, preservada en les diferents races canines actuals. El coneixement del genoma del gos ens està proporcionant un coneixement detallat
Domesticació en animals i evolució 175 Taula 1. Alguns animals domesticats i el seu origen Espècie Gos Gat Ovella Cabra Vaca (Bos taurus) Zebú (Bos indicus) Porc Cavall Ase Llama Conill Gall Abella
Primera prova arqueològica (any aC) 14.000 7.000 10.000 10.000 9.000 3.000 9.000 8.000 6.000 6.000 Edat mitjana 8.000 7.000
del procés de domesticació, encara que no existeixi una interpretació senzilla per a totes les dades. Per exemple, estudis de DNA mitocondrial (transmès només via femella) indiquen que hi ha molts llinatges de llop que van ser domesticats, fet que indica que la domesticació va ser un procés gradual o va ocórrer moltes vegades. Els estudis del cromosoma Y indiquen que hi ha molt poca variabilitat dins de cada raça, però que aquesta és relativament elevada entre races. És a dir, cada raça estaria caracteritzada per un sol cromosoma Y, i això suggereix que no hi ha intercanvi de mascles entre races. En altres espècies, com el cavall, gairebé no hi ha variabilitat dins del cromosoma Y. A més, l’estructura en races molt tancades ha d’haver influït d’una manera particular el genoma del gos. Efectivament, el que comencem a conèixer ara és que el desequilibri de lligament, és a dir, l’associació entre al·lels de gens més o menys pròxims, és molt particular. Com més homogènia sigui una raça, com més consanguínia i tancada, major serà el desequilibri de lligament. En una població absolutament consanguínia el desequilibri seria total. El que observem en els gossos és que el desequilibri és molt ele-
Zona Europa, Àsia Orient Pròxim Orient Pròxim Orient Pròxim Orient Pròxim Pakistan Europa, Àsia Àsia central NE d’Àfrica Andes N del Mediterrani SE d’Àsia Àfrica
vat dins de les races, i bastant més moderat entre races. A més, el desequilibri entre races és en part a causa de la domesticació, és una empremta causada pel fet que els gossos domèstics es van originar a partir d’un subconjunt d’animals salvatges, els llops. MODELS EVOLUTIUS DE DOMESTICACIÓ La ciència de l’evolució aspira a explicar com la variabilitat genètica de les espècies s’ha mantingut i modificat de manera que permet l’adaptació de les espècies al medi. En el nostre cas, entenem per adaptació l’adaptació en què intervenen els humans. Un aspecte clau per als estudis evolutius és el concepte de model. Un model és una simplificació de la realitat, una abstracció, que ens permet entendre què és el que ha ocorregut. En el cas de la domesticació podem plantejar diversos models. El model més senzill és el de coll d’ampolla (vegeu la figura 2a). Un coll d’ampolla és, en sentit evolutiu, una disminució del cens de la població. Considerem com a exemple el cas de la població inicial d’Amèrica, fa
176 M. Pérez-Enciso
diversos milers d’anys. Els primers pobladors humans d’Amèrica provenien d’Àsia. Lògicament, no tots els asiàtics es van mudar a Amèrica, sinó només un grup. Posteriorment, ja a Amèrica, els pobladors van colonitzar el conjunt del territori des del nord fins al sud, i va augmentar la població. Aquest és un fenomen de coll d’ampolla pel que fa a la població indígena americana. Quines conseqüències genètiques té un coll d’ampolla? Diverses, però la més rellevant és que es produeix una pèrdua de variabilitat, perquè la població actual és només una fracció de l’anterior. Clarament, les espècies domèstiques són el resultat d’un coll d’ampolla, ja que no tots els individus inicialment salvatges van ser domesticats. Per tant, inicialment, la domesticació va produir una pèrdua irreparable de la variació genètica total de l’espècie. Per exemple, tal com comentem, gairebé tots els cavalls actuals presenten el mateix cromosoma Y. Se sap que els cavalls de pura sang són descendents de molt poques parelles que van viure a l’edat mitjana. En el cas del gos, hem
vist com un coll d’ampolla produeix un increment en el desequilibri de lligament. El model de coll d’ampolla senzill pot aplicarse a algunes plantes com el blat de moro, però no sembla realista per a la majoria d’espècies domèstiques d’animals. En efecte, el model del coll d’ampolla és massa simplista per poder explicar tot el que observem. Per exemple, sabem que la majoria de les espècies es van domesticar en diverses ocasions (Vila et al., 2005): el porc es va domesticar a l’Àsia, Europa i l’Orient Pròxim, i el boví i el gos també en diverses zones asiàtiques. De la mateixa manera, en la colonització humana d’Amèrica no va haver-hi una, sinó diverses onades provinents d’Àsia que van travessar l’estret de Bering. Per tant, hem de modificar el nostre model inicial per acomodar els diversos esdeveniments de domesticació i proposar un model amb múltiples colls d’ampolla, tal com representem a la figura 2b. Aquest model, al seu torn, prediu que la variabilitat total serà molt major que en el model d’un sol coll d’ampolla, encara que la variabilitat dins de cada lli-
Figura 1. Reconstrucció de la domesticació i expansió de l’abella, segons dades de Whitfield et al. (2006).
Domesticació en animals i evolució 177
natge, de cada raça, per exemple, serà bastant reduïda. Aquest model prediu, tal com ocorre amb els gossos, un desequilibri de lligament, elevat dins de races i molt més feble entre races. El model de la figura 2b suggereix que les diverses línies domesticades no intercanvien gens entre si, i evolucionen com si fossin espècies separades. De nou, aquest model sembla massa naïf. Sabem que hi ha hagut intercanvi genètic entre poblacions fins i tot molt distants. Per exemple, en el cas del porcí les races asiàtiques, domesticades independentment a l’Àsia, van ser importades i encreuades amb porcs europeus per millorar-ne la fecunditat, ja que les races xineses són conegudes per tenir molts descendents. I també es buscava augmentar la quantitat de greix dels animals, ja que els porcs xinesos són molt més grassos que els europeus. Avui dia no interessa el greix animal, per qüestions de salut, però sí que ens continua important tenir truges molt prolífiques, per millorar el rendiment econòmic de les granges. En resum, no és realista pensar que les poblacions domèstiques s’han mantingut aïllades unes d’altres. Si continuem amb el símil de la població d’Amèrica, es va produir a partir del segle xvi una nova colonització, aquesta vegada europea i africana (els esclaus). Per tant, els moderns habitants d’Amèrica tenen un origen no solament indígena, provinent d’Àsia, sinó també europeu i africà. La diversitat actual és molt major que la que hi havia abans dels viatges de Colom, malgrat el coll d’ampolla que es va produir com a conseqüència de la colonització europea d’Amèrica. Com els animals domèstics han seguit una història paral·lela a la humana, no hi ha cap raó per pensar que l’estructura demogràfica dels animals domèstics sigui més senzilla. Una manera de representar aquesta història és mitjançant un model reticulat (vegeu la figura 2c). Segons aquest model, hi ha diversos colls d’ampolla com a
conseqüència de la domesticació, però també hi ha migració entre les diferents poblacions. Una primera conseqüència d’aquest model és que la variabilitat genètica dins de les races augmenta pel que fa al model 3b. No obstant això, una conseqüència d’aquest model és que les races poden ser un calaix de sastre, molt heterogènies i difícils de caracteritzar. Tots tenim una idea més o
a
b
c
salvatge
domèstic temps
Figura 2. Models demogràfics de domesticació: a) en el coll d’ampolla, la població domèstica és un subconjunt petit de la salvatge, b) en el coll d’ampolla múltiple existeixen diversos processos de domesticació que resulten en poblacions discontínues, aïllades i c) en el model reticulat ocorre com en b, però amb poblacions que intercanvien material genètic de manera contínua o esporàdica (línies discontínues).
178 M. Pérez-Enciso
menys intuïtiva del que és una raça. És més, la simple existència de les races ens sembla d’allò més natural. Si entenem com a raça una població d’animals més o menys tancada, la raça animal més antiga és, probablement, la raça merina d’ovelles. Aquesta raça va produir una gran quantitat de divises a la Corona de Castella per l’alt valor de la llana. Cal recordar aquí que la seva exportació va estar prohibida durant molt temps, en el que és probablement el primer exemple de la història de protecció del patrimoni genètic. La major part de les races es van crear a partir de finals del segle xviii a l’Anglaterra industrial. No va ser sempre l’interès econòmic el que va moure els criadores de l’època, sinó sovint l’objectiu estètic, per exemple en els coloms. Avui dia, no es pot assegurar que les races hagin estat aïllades, especialment en animals de granja, en els quals preval l’interès econòmic sobre l’estètic o el de conservació. Per tant, el model reticulat sembla una bona aproximació per explicar les conseqüències de la domesticació i la criança moderna d’animals sobre la variabilitat del genoma. COLOFÓ En resum, la domesticació no és res més que evolució. No necessitem invocar cap mecanisme genètic nou o distint per explicar els canvis esdevinguts durant la domesticació i després d’aquesta. Però atès l’èxit espectacular d’alguns d’aquests canvis, per exemple l’experiment de Belyaev en guineus, la domesticació ens recorda com cap altre procés que l’evolució pot ocórrer a gran velocitat. No hi ha dubte que la domesticació va ser un èxit, i va provocar canvis de gran repercussió en la història humana i de les espècies domesticades. Això va ser així perquè la domesticació és, des d’un punt de vista estrictament biolò-
gic, simbiosi, i no parasitisme. S’ha produït una coadaptació entre les espècies humanes i domèstiques (Beja-Pereira et al., 2003). Per tant, no sembla raonable considerar la domesticació, utilitzant valors purament antropocèntrics, com una relació de subjugació. Finalment, el que caracteritza sobretot la domesticació és que va ser un procés molt complex. Per a la majoria de les espècies, les dades genètiques suggereixen que no va haver-hi un sol esdeveniment de domesticació, sinó múltiples, i que, a més, la domesticació no va ser un procés puntual, sinó gradual. Va haver-hi estadis intermedis i retorns a l’estat salvatge. A més, el procés de domesticació va ser diferent en cada espècie. En el cas del gos, els antics pobladors d’Amèrica van entrar al Nou Món procedents d’Àsia duent amb ells els seus gossos ja domesticats. El porc, en canvi, va ser domesticat en múltiples ocasions i en diverses regions d’Àsia, el Pròxim Orient i Europa a partir de les poblacions locals. AGRAÏMENTS Agraeixo a Julio Rozas la seva inestimable ajuda en múltiples converses sobre el tema, així com a Carmen Segarra i Arcadi Navarro haver tingut la gentilesa de pensar en mi per a aquest capítol. La major part del meu treball està finançat pel Ministeri d’Educació i Ciència, principalment els projectes AGL2007-65563-C02-01/GAN, les accions complementàries internacionals PCI2006-A7-0529 i PCI2006-A7-0523, el Projecte Consolíder del Centre d’Investigació en Agrogenòmica CSIC-IRTA-UAB, i l’Agència Espanyola de Cooperació Internacional AECI A/9111/07.
Domesticació en animals i evolució 179
BIBLIOGRAFIA Beja-Pereira, A.; Luikart, G.; England, P. R. [et al.] (2003). «Gene-culture coevolution between cattle milk protein genes and human lactase genes». Nat. Genet., 35: 311-313. Bruford, M. W.; Bradley, D. G.; Luikart, G. (2003). «DNA markers reveal the complexity of livestock domestication». Nat. Rev. Genet., 4: 900-910. Driscoll, C. A.; Menotti-Raymond, M.; Roca, A. L. [et al.] (2007). «The Near Eastern origin of cat domestication». Science, 317: 519-523. Eriksson, J.; Larson, G.; Gunnarsson, U. [et al.] (2008). «Identification of the yellow skin gene reveals a hybrid origin of the domestic chicken». PLoS Genet., 4: e1000010. Fernandez, H.; Hughes, S.; Vigne, J. D. [et al.] (2006). «Divergent mtDNA lineages of goats in an Early Neolithic site, far from the initial domestication areas». Proc. Natl. Acad. Sci. USA, 103: 15375-15379 Lindblad-Toh, K.; Wade, C. M.; Mikkelsen, T. S. [et al.]
(2005). «Genome sequence, comparative analysis and haplotype structure of the domestic dog». Nature, 438: 803-819. Pedrosa, S.; Uzun, M.; Arranz, J. J. [et al.] (2005). «Evidence of three maternal lineages in Near Eastern sheep supporting multiple domestication events». Proc. Biol. Sci., 272: 2211-2217. Vila, C.; Savolainen, P.; Maldonado, J. E. [et al.] (1997). «Multiple and ancient origins of the domestic dog». Science, 276: 1687-1689. Vila, C.; Seddon, J.; Ellegren, H. (2005). «Genes of domestic mammals augmented by backcrossing with wild ancestors». Trends Genet., 21: 214-218. Wayne, R. K.; Ostrander, E. A. (2007). «Lessons learned from the dog genome». Trends Genet., 23: 557-567. Whitfield, C. W.; Behura, S. K.; Berlocher, S. H. [et al.] (2006). «Thrice out of Africa: ancient and recent expansions of the honey bee, Apis mellifera». Science, 314: 642-645.
DOI: 10.2436/20.1501.02.84
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 181-194
LA MICROEVOLUCIÓ EN ACCIÓ: MARCADORS GENÈTICS DEL CANVI CLIMÀTIC Lluís Serra Departament de Genètica, Facultat de Biologia, Universitat de Barcelona. Adreça per a la correspondència: Lluís Serra. Departament de Genètica, Facultat de Biologia, Universitat de Barcelona. Av. Diagonal, 645. 08028 Barcelona. Adreça electrònica: lserra@ub.edu. RESUM La introducció i ràpida expansió de Drosophila subobscura al Nou Món, unes tres dècades ençà, va donar l’oportunitat de determinar la predictibilitat i la taxa d’evolució de les clines geogràfiques. A més a més, les comparacions de mostres històriques i recents de les freqüències d’inversions cromosòmiques ha permès determinar si el canvi genètic segueix l’empremta del canvi climàtic en les poblacions naturals. Paraules clau: polimorfisme cromosòmic, adaptació, canvi climàtic. MICROEVOLUTION IN ACTION: GENETIC MARKERS OF CLIMATIC CHANGE SUMMARY The introduction and rapid spread of Drosophila subobscura in the New World three decades ago provide an opportunity to determine the predictability and rate of evolution of geographic clines. Furthermore, comparisons of recent with historical samples of chromosome inversion frequencies provide opportunities to determine whether genetic change is tracking climate change in natural populations. Key words: chromosomal polymorphism, adaptation, climatic change.
182 L. Serra
POLIMORFISMES CROMOSÒMICS PER INVERSIONS Parlem de polimorfisme quan en una mateixa població existeixen dos o més al· lels o dos o més fenotips heretats en freqüències apreciables. Encara que un polimorfisme pot estar controlat pels al·lels d’un únic locus (com en el cas dels grups sanguinis humans ABO), les formes més complexes de polimorfisme estan controlades per supergens, formats pels al·lels de molts locus genètics fortament lligats en el mateix cromosoma. Un cas particular el constitueixen els polimorfismes cromosòmics, en el qual els individus d’una població es diferencien respecte al seu nombre de cromosomes o per la seva estructura. En moltes espècies de Drosophila, els polimorfismes cromosòmics per inversions tenen un significat evolutiu particularment important. La seva investigació ha permès fer avenços importants en la genètica de poblacions experimental. Aquests polimorfismes es caracteritzen pel fet que els individus d’una població presenten més d’un tipus d’un determinat cromosoma homòleg, i cadascun d’aquests tipus es diferencia per la disposició invertida (inversió) de determinats fragments de l’esmentat homòleg. Fixem-nos, doncs, que els polimorfismes cromosòmics representen només indirectament els polimorfismes genètics. En moltes espècies de Drosophila i en d’altres dípters, com en els gèneres de mosquit Chironomus, Culex i Anopheles, s’observen molts polimorfismes cromosòmics per inversions. En aquests insectes les inversions es poden observar particularment bé, ja que tots posseeixen cromosomes gegants (politènics) en els nuclis de les cèl·lules de les glàndules salivals de les larves, però és probable que altres espècies animals i vegetals tinguin també polimorfismes cromosòmics per inversions, encara que les observacions
en aquests casos siguin més difícils a causa de la manca de cromosomes gegants. Les inversions s’originen quan un cromosoma es trenca per dos llocs i el fragment resultant s’inverteix i es torna a soldar en els punts de trencament. Quan la inversió inclou el centròmer del cromosoma s’anomena pericèntrica, i quan no l’inclou, paracèntrica (vegeu la figura 1). En les poblacions naturals només les inversions paracèntriques tenen rellevància evolutiva. En combinació heterozigòtica (quan l’individu té un cromosoma homòleg normal i l’altre amb la inversió), les inversions suprimeixen la recombinació en el fragment invertit. Els heterozigots per una inversió es poden observar bé en els cromosomes gegants de les glàndules salivals dels dípters. Això és degut al fet que aquests cromosomes es formen per juxtaposició de moltes cromàtides de cada homòleg, i, a més a més, els dos homòlegs estan íntimament aparellats (aparellament somàtic). Això fa que siguin cromosomes molt grans (gegants), els quals tenen un patró de bandes transversals característic a causa de la superposició dels cromòmers (zones molt espiralitzades) de cada cromàtida. Si un dels dos homòlegs té una inversió i l’altre no, per assolir un aparellament somàtic correcte els dos homòlegs han de formar, en aparellar-se, una nansa o llaç (nansa d’inversió) a la zona del fragment invertit. A la figura 2 es presenta un esquema de la formació d’aquesta nansa en un heterozigot per la inversió E8 de D. subobscura (vegeu més endavant la descripció del sistema d’inversions d’aquesta espècie). Els heterozigots per una inversió també s’anomenen heterocariotips. En el cas de les inversions paracèntriques, si es produeix un entrecreuament dins del fragment invertit en un heterocariotip, les cromàtides recombinants són acèntriques o dicèntriques, les quals, durant la meiosi de les femelles, van a parar als corpuscles polars i no a l’oòcit.
La microevolució en acció: marcadors genètics del canvi climàtic 183
En Drosophila, en els mascles no es produeixen entrecreuaments. Això explica perquè en els gàmetes dels heterocariotips no es troben cromàtides recombinants (la supressió de la recombinació), i també que la fertilitat d’aquests individus sigui normal. Aquest mecanisme no es dóna en el cas de les inversions pericèntriques, la qual cosa pot explicar el fet que aquestes inversions siguin molt rares en les poblacions naturals. Si es produeix un doble entrecreuament dins de la inversió, però, les cromàtides recombinants són normals; tanmateix, la probabilitat d’aquest esdeveniment és molt petita. Com es mostra a la figura 2, els homocariotips (homozigots per al cromosoma invertit o per al cromosoma normal) no presenten cap nansa, com cal esperar, encara que ambdós es poden distingir pel patró de bandes transversals. D. subobscura és una espècie paleàrtica que recentment (fa uns trenta anys) ha colonitzat el continent americà. Una dotació cromosòmica haploide d’aquesta espècie consisteix en cinc cromosomes acrocèntrics (anomenats A, E, J, O i U) i un cromosoma molt petit, puntiforme. En tots els cromo-
Figura 1. Inversió paracèntrica (a) i pericèntrica (b) senzilles. La seqüència gènica ancestral (St) se simbolitza amb l’ordre numèric natural. Mitjançant trencaments entre 1-2 i 9-10 (respectivament, entre 6-7 i 11-12), un gir de 180° i la posterior unió dels fragments amb la resta del cromosoma, s’originen les estructures invertides corresponents.
somes acrocèntrics de l’espècie s’ha observat un polimorfisme per inversions molt ric. S’han descrit més de seixanta inversions diferents, que s’agrupen en més de noranta ordenaments cromosòmics (diferents complexos d’inversions) en les més de cent cinquanta poblacions naturals que s’han analitzat fins ara (Krimbas, 1992). El patró de nanses observat en els heterocariotips per a alguns d’aquests ordenaments pot ser molt complicat i reconegut només pels millors especialistes. A la figura 3 s’inclou una fotografia d’un heterocariotip per a un d’aquests ordenaments del cromosoma O, i també un esquema explicatiu que en facilita la interpretació. Alguns d’aquests ordenaments són rars o es localitzen només en àrees concretes, però almenys dos o més ordenaments de cada cromosoma estan àmpliament distribuïts en tota l’àrea de distribució de l’espècie i les seves freqüències presenten una variació clinal que està correlacionada amb la latitud geogràfica (Prevosti, 1966). S’entén per clina un canvi sistemàtic de la freqüència d’un ordenament (o d’una inversió) al llarg d’un gradient geogràfic. Les clines latitudinals es poden mesurar mitjançant el pendent de la recta de regressió de la freqüència (corregida) de l’ordenament (o inversió) en cadascuna de les localitats analitzades. Per analitzar el polimorfisme cromosòmic és fonamental disposar de soques (línies pures) homocariotípiques per a tots els cromosomes, i definir el que s’entén per ordenament estàndard (ST), respecte al qual tots els altres ordenaments són comparats, mitjançant el patró de nanses observat en els heterocariotips. En el cas de D. subobscura, l’elecció dels ordenaments estàndard es remunta al mapa cromosòmic publicat per Mainx et al. (1953), el qual va utilitzar l’única soca de D. subobscura aleshores disponible en el laboratori, procedent de la localitat suïssa de Küsnacht, que era homocariotípica per a tots els
184 L. Serra
cromosomes. El mapa va ser millorat més tard per Kunze-Mühl i Müller (1958), i és el que normalment s’utilitza avui dia. Els ordenaments estàndard són freqüents en les poblacions del nord però la seva freqüència va decreixent gradualment cap al sud. Altres ordenaments, però, els quals difereixen dels estàndard per una o més inversions, no s’observen en les poblacions del nord i la seva freqüència va augmentant cap al sud.
LA BASE GENÈTICA DE LA VARIACIÓ DE L’APTITUD ENTRE ORDENAMENTS CROMOSÒMICS Els estudis més detallats del polimorfisme cromosòmic per inversions en poblacions naturals van ser fets per Dobzhansky i els seus col·laboradors en l’espècie nordamericana D. pseudoobscura. En aquesta espècie el polimorfisme cromosòmic per inversions es limita molt sovint a tan sols un dels quatre cromosomes llargs, és a dir, al cromosoma 3. No tan sols s’observen inversions senzilles, sinó també ordenaments complexos formats per inversions superpo-
Figura 2. Esquema de dos homocariotips (E st/Est i E8/E8) i d’un heterocariotip (Est/E8) per la inversió E8 de D. subobscura. Observeu la nansa d’inversió en l’heterocariotip, i que ambdós homocariotips es poden distingir pel patró de bandes dels cromosomes politènics.
sades o incloses unes dins de les altres. En D. pseudoobscura, cada ordenament s’anomena segons el nom de la localitat on va ser observat per primera vegada: així, juntament amb els ordenaments estàndard (ST), es troben els anomenats Chiricahua (CH), Arrowhead (AR), etc. A la figura 4 es representa la distribució geogràfica dels ordenaments ST, AR i PP (Pikes Peak). A l’oest dels EUA l’ordenament ST és relativament freqüent, però ja és rar a Arizona i no s’observa a Texas. A l’inrevés succeeix amb l’ordenament PP, i l’ordenament CH té la màxima freqüència a Arizona i Nou Mèxic (Sinnot et al., 1958). Veiem, doncs, que aquests ordenaments es distribueixen segons clines longitudinals (oest-est). Durant la dècada dels trenta, Dobzhansky i els seus col· laboradors van col·lectar D. pseudooobscura i D. persimilis (una espècie sinmòrfica de D. pseudoobscura) a Califòrnia i els estats veïns. Utilitzant la tècnica de Painter (1933), van estudiar els cromosomes politènics d’ambdues espècies i van descobrir que les poblacions naturals eren polimòrfiques per a molts ordenaments cromosòmics. Dob zhansky estava convençut que els diferents ordenaments estaven mantinguts en les poblacions per selecció a favor dels heterozigots (vegeu més endavant). Més tard, va fer també un descobriment interessant, sobretot pel que fa referència a la segona part d’aquest treball: un dels ordenaments, anomenat PP (Pikes Peak), era molt rar en les poblacions estudiades fins al 1946, però el 1958 la seva freqüència havia incrementat fins a un 8 %. No solament això, sinó que aquesta freqüència era semblant en totes les poblacions incloses en una àrea de 500.000 km2 a Califòrnia. Aquest canvi hauria d’estar correlacionat amb el canvi d’algun factor selectiu ambiental, no identificat. Ens podríem preguntar com s’originen aquesta mena de polimorfismes cromosòmics i quin és el seu significat evolutiu per
La microevolució en acció: marcadors genètics del canvi climàtic 185
a les poblacions. En general s’admetia que l’origen de les inversions era un esdeveni-
Figura 3. Nanses d’inversió complexes en els cromosomes gegants de D. subobscura. La foto correspon a un heterocariotip O3 + 4 + 1/Ost. En l’esquema, la trajectòria del cromosoma normal es representa mitjançant una línia contínua i la trajectòria del cromosoma amb les inversions O3 + 4 i O1, amb una línia discontínua. A la part inferior de l’esquema s’explica l’origen del complex d’inversions (ordenament) O3 + 4 + 1 mitjançant una sèrie d’inversions successives. La lletra O simbolitza un cromosoma de l’espècie.
ment molt poc probable, i que no era possible que es tornés a produir espontàniament exactament la mateixa inversió, amb uns punts de trencament idèntics. Això encara era més clar en el cas dels ordenaments complexos, com els que s’observen en D. subobscura (vegeu la figura 3). Això demostrava que el polimorfisme per inversions no es mantenia mitjançant mutacions espontànies recurrents d’una determinada estructura. Per què hi ha uns ordenaments i no uns altres en el pool gènic de la població és una qüestió força debatuda. Potser és degut a efectes de posició positius o negatius, que mantenen o eliminen els ordenaments un cop aquests s’han originat espontàniament. Actualment, amb el coneixement més detallat de què es disposa a escala molecular dels elements genètics transposables, s’ha comprovat que la recombinació ectòpica (recombinació entre segments de DNA amb homologia de seqüència que es troben en diferents posicions en el cromosoma) entre seqüències homòlogues de dues còpies d’un element transposable pot afectar fragments cromosòmics molt grans i produir inversions. En Drosophila s’ha observat que els punts de trencament de les inversions presents en les poblacions naturals contenen elements transposables (Cáceres et al., 1999). La invasió del genoma per part d’una classe d’elements transposables distribueix una gran quantitat de seqüències homòlogues per tot el genoma, la qual cosa facilita enormement la recombinació ectòpica (Fontdevila i Moya, 2003). Els punts de trencament de les inversions es poden considerar punts calents d’insercions d’elements transposables, i mostren una gran inestabilitat genètica. També s’ha comprovat que la conversió gènica està implicada en la transferència d’informació genètica entre inversions de poblacions naturals (Rozas i Aguadé, 1994). Considerant el seu efecte sobre la recombinació i el flux gènic entre inversions,
186 L. Serra
l’entrecreuament és molt més important que la conversió gènica en el cas d’inversions grans, mentre que la conversió adquireix importància en inversions petites i a prop dels punts de trencament (Navarro et al., 1997). Però, per què, en general, els polimorfismes per inversions es mantenen com a part essencial i permanent de la variabilitat genètica de les poblacions? Les investigacions clàssiques dutes a terme per Dobzhansky i Wright ens ajuden a respondre aquesta pregunta. En primer lloc comentaré breument els resultats obtinguts en caixes de poblacions. Dobzhansky va ser el primer que va demostrar la utilitat de les caixes de poblacions per estudiar la dinàmica evolutiva de les inversions (Wright i Dobzhansky, 1946). Per poder mantenir poblacions experimentals de Drosophila al laboratori s’utilitzen les anomenades caixes de poblacions, recipi-
Figura 4. Freqüència dels ordenaments cromosòmics ST (estàndard), AR (Arrowhead) i PP (Pikes Peak) de D. pseudoobscura, en diferents localitats dels EUA (Sinnot, Dunn i Dobzhansky, 1958, p. 278).
ents de metacrilat amb forats laterals per on s’introdueixen els vials amb medi de cultiu fresc o s’extreuen els vials amb medi ja consumit. Normalment, si les condicions de cultiu són bones, el cens de la població d’una caixa por arribar ràpidament a valors d’uns quants milers d’individus, amb la qual cosa es poden excloure dels resultats obtinguts els efectes de la deriva genètica. Si s’utilitzen intervals de temps adients entre la introducció dels vials nous i l’extracció dels vells, es pot mantenir la població durant un nombre indefinit de generacions. El cens de la població està limitat, naturalment, per la disponibilitat d’aliments. Per tant, s’arriba a una situació d’equilibri, en la qual cada parella produeix, de mitjana, dos descendents; però, com que la fertilitat de cada femella de Drosophila és molt més elevada, es produeix una «lluita per la subsistència», és a dir, una forta selecció, entre els individus de la caixa. Dobzhansky (1948) va fundar caixes de poblacions de D. pseudoobscura que contenien diferents proporcions de dos ordenaments cromosòmics existents en les poblacions naturals. Els progenitors de les mosques utilitzades per fundar cadascuna de les caixes es van col·lectar a les localitats de Piñon Flats, Keen Camp i Mather (Califòrnia). Piñon Flats i Keen Camp estan molt a prop una de l’altra (13 km) però les característiques biòtiques d’ambdues localitats són molt diferents. Mather es troba a uns 500 km al nord, a la Sierra Nevada. En cada caixa s’introduïa una barreja de mosques procedents de la mateixa localitat, amb una determinada proporció de dos ordenaments cromosòmics. Cada dos o tres mesos es prenien mostres d’ous de la caixa i es mantenien les larves fins que tenien les condicions òptimes; aleshores s’analitzaven els cromosomes gegants de les glàndules salivals d’aquestes larves i així es determinaven les freqüències dels dos ordenaments.
La microevolució en acció: marcadors genètics del canvi climàtic 187
Per tant, es coneixien les freqüències de cada tipus cromosòmic que hi havia a les caixes en cadascun dels intervals indicats. A la figura 5 es presenten els resultats obtinguts en el cas de les caixes 39 i 40, iniciades amb unes proporcions determinades dels ordenaments AR i CH, procedents de la mateixa localitat. En ambdós casos s’arriba a un polimorfisme i no desapareix cap ordenament. A la caixa 39, l’ordenament AR tenia una freqüència inicial al voltant del 80 %, i a la caixa 40 al voltant del 20 %. En ambdós casos la corba de freqüències s’aproxima a un valor d’equilibri de la freqüència d’AR del 60 %. Independentment de l’origen geogràfic, els heterocariotips tenen major aptitud que els homocariotips corresponents. Segons això, el procés de selecció natural no determina l’eliminació d’un ordenament i la fixació de l’altre; en lloc d’això s’arriba a un equilibri en el qual ambdós ordenaments es mantenen amb unes freqüències defini-
des. El valor adaptatiu dels diferents ordenaments depèn de l’origen geogràfic de les mosques. Així, els homocariotips AR/AR són molt superiors als homocariotips CH/ CH si els cromosomes implicats són de la població de Piñon Flats i no pas, per exemple, de Mather. Això demostra que els cromosomes amb els mateixos ordenaments que es troben en diferents localitats tenen continguts genètics diferents. En una determinada localitat, els continguts genètics dels cromosomes amb diferents ordenaments estan mútuament coadaptats per la selecció natural, la qual cosa és la causa de l’heterosi observada (de la major aptitud dels heterocariotips). Hipòtesi de la coadaptació A què és degut aquest efecte heteròtic que s’observa en els heterocariotips? Per
Figura 5. Variació estacional de les freqüències dels ordenaments cromosòmics AR (Arrowhead) i CH (Chiricahua) en poblacions experimentals de D. pseudoobscura. Independentment de les freqüències cromosòmiques inicials amb què s’han fundat les caixes, s’arriba a les freqüències d’equilibri: 60 % d’AR i 40 % de CH (caixes fundades amb individus d’una població natural concreta).
188 L. Serra
què els heterocariotips estan seleccionats positivament? La hipòtesi de la coadaptació intenta donar una resposta a aquestes preguntes. El terme coadaptació té dos aspectes. En primer lloc, els al·lels que interaccionen dins d’una inversió estan coadaptats entre si per produir un genotip particularment adaptat (efectes epistàtics sobre l’aptitud). En segon lloc, ja que almenys inicialment la nova inversió es trobarà sobretot en combinació heterozigòtica, el seu block d’al·lels —que es mantenen junts a causa de la manca de recombinació— ha d’estar coadaptat amb els al·lels dels ordenaments cromosòmics alternatius, de tal manera que l’heterocariotip tingui una aptitud superior. Els experiments realitzats per Dobzhansky en caixes de poblacions són els que han aportat més proves a favor de la hipòtesi de la coadaptació, basada en el contingut genètic de les inversions. Com hem vist, aquests experiments van demostrar que cada ordenament cromosòmic d’una població està coadaptat de manera específica amb els ordenaments alternatius de la mateixa població. Per tant, almenys en D. pseudoobscura, el caràcter adaptatiu del polimorfisme cromosòmic per inversions és molt específic, i només són compatibles aquells ordenaments cromosòmics que provenen de la mateixa població natural: quan els experiments en caixes de poblacions s’inicien, amb els ordenaments A i B obtinguts de la mateixa població, s’arriba a un polimorfisme estable. Quan els ordenaments A i B provenen de poblacions diferents els resultats obtinguts són impredictibles. A més a més, la recombinació entre ordenaments idèntics però procedents de poblacions naturals diferents elimina el caràcter heteròtic de les combinacions heterocariotípiques, és a dir, la coadaptació. Altres autors han intentat millorar els experiments en caixes, per simular una mica millor les condicions de la natura. Anderson et al. (1967) van prendre mostres
d’onze poblacions naturals de D. pseudoobscura i van fundar onze caixes de poblacions amb les mateixes freqüències dels ordenaments que hi havia en les poblacions naturals. Els resultats obtinguts demostraven clarament que el contingut genètic del mateix ordenament podia ser molt diferent en cadascuna de les poblacions. POLIMORFISMES CROMOSÒMICS RÍGIDS I FLEXIBLES En un estudi comparatiu del polimorfisme cromosòmic de diferents espècies de Drosophila, Dobzhansky classifica aquests polimorfismes com a flexibles o rígids (Dob zhansky, 1962). En les espècies que tenen un polimorfisme cromosòmic flexible, la freqüència dels diferents ordenaments en les poblacions naturals varia segons les fluctuacions dels factors ambientals. La majoria de poblacions de D. pseudoobscura en són un exemple: en aquestes poblacions les freqüències relatives dels ordenaments cromosòmics varien en funció de la temperatura, tant en les poblacions naturals com en les de laboratori. Això fa que s’observin també oscil·lacions estacionals cícliques molt clares dels diferents ordenaments en una població i fortes diferències entre les poblacions. També es troben diferències notables entre poblacions properes però que tenen condicions biòtiques molt diferents pel fet que estan situades en diferents altituds. En canvi, en les espècies que tenen un polimorfisme rígid no s’observen desviacions estacionals de les freqüències dels diferents ordenaments, o aquestes són insignificants. Les poblacions properes però amb condicions biòtiques diferents tampoc no presenten diferències, i en casos extrems, com el de D. pavani (Brncic, 1957), tampoc no s’observen diferències entre poblacions molt separades geogràficament.
La microevolució en acció: marcadors genètics del canvi climàtic 189
Què succeeix en el cas del polimorfisme cromosòmic per inversions de D. subobscura? És rígid o flexible? Dobzhansky (1962) considerava que era rígid, basant-se en les observacions de Kunze-Mühl et al. (1958), les quals coincidien amb les de Stumm-Zollinger (1953) i Pentzos-Daponte (1964). En tots aquests estudis es va analitzar la variació estacional del polimorfisme cromosòmic de D. subobscura en una localitat determinada; en cap cas no es van detectar variacions significatives de les freqüències dels diferents ordenaments. Prevosti (1964) va analitzar el polimorfisme cromosòmic de poblacions d’aquesta espècie de l’àrea de Barcelona, però en localitats que tenien condicions microevolutives molt diferents, i tampoc no va observar diferències. Però també hi ha altres estudis en els quals s’ha observat una variació estacional o altitudinal del polimorfisme de D. subobscura. Burla i Götz (1965) observen una variació estacional significativa de les freqüències de determinats ordenaments en localitats de les rodalies de Zürich. Krimbas (1964) observa també variacions estacionals del polimorfisme cromosòmic en poblacions gregues de l’espècie i atribueix les distribucions de determinats ordenaments a un efecte de la temperatura. Del que sí que no hi ha dubte és que el polimorfisme cromosòmic de D. subobscura varia molt al llarg d’àrees geogràfiques molt esteses —recordem les clines latitudinals que presenten alguns ordenaments de l’espècie, les quals hem esmentat al començament d’aquest treball. Les poblacions del nord d’Europa, per exemple, tenen un polimorfisme molt pobre i es poden considerar en aquest sentit com poblacions marginals. Les poblacions mediterrànies tenen un polimorfisme molt ric i les centreeuropees es poden considerar intermèdies. Rodríguez-Trelles et al. (1996) detecten variació del polimorfisme per inversions del cromosoma O de D. subobscura a
dos nivells: una variació a curt termini, estacional (primavera, començament d’estiu, finals d’estiu i tardor), amb canvis estacionals repetits al llarg dels anys dels ordenaments més freqüents, correlacionats amb la variació estacional de factors climàtics com la temperatura, la humitat, la pluviositat i la insolació, i una variació a llarg termini, direccional, d’algun ordenament.
VALOR ADAPTATIU DEL POLIMORFISME CROMOSÒMIC PER INVERSIONS DE D. subobscura El fet que les trajectòries evolutives siguin ràpides o lentes, graduals o puntuades i predictibles o contingents, ha estat molt debatut en biologia evolutiva. L’avaluació de les trajectòries microevolutives de conjunts replicats de poblacions naturals a una escala geogràfica rarament és factible (Balanyà et al., 2003). Els casos en què això es pot fer inclouen aquelles espècies que han envaït recentment diferents àrees geogràfiques; en aquest cas, una manera de demostrar que s’ha produït un canvi microevolutiu ràpid, uniforme i predictible, a escala geogràfica, és comprovar si en les poblacions invasores evolucionen ràpidament clines geogràfiques paral·leles i independents de les existents en les poblacions de l’àrea de distribució original de l’espècie. Si, al contrari, les poblacions invasores desenvolupessin clines idiosincràtiques, caldria donar aleshores més importància a la deriva genètica com a factor responsable de la variació observada. D. subobscura és una espècie idònia per avaluar les trajectòries microevolutives (Ayala et al., 1989). Com ja he comentat, molts ordenaments cromosòmics presenten clines latitudinals a la regió paleàrtica. A més a més, dades de sèries temporals
190 L. Serra
obtingudes en algunes localitats europees indiquen que les freqüències d’alguns ordenaments, típics de latituds càlides, han augmentat (Orengo i Prevosti, 1996; RodríguezTrelles i Rodríguez, 1998; Solé et al., 2002). Fa uns trenta anys l’espècie va colonitzar Amèrica del Sud i del Nord. Ambdues àrees colonitzades tenen els mateixos ordenaments cromosòmics, els quals van ser transportats per la mostra d’individus colonitzadors (dos del cromosoma A, dos del J, tres de l’U, cinc de l’E i sis de l’O). Aquests ordenaments són els més freqüents de la regió paleàrtica, llevat de la inversió O5. L’espècie ha colonitzat amplies àrees (> 15° de latitud) tant a Amèrica del Nord com del Sud, i les poblacions colonitzadores han quedat exposades a gradients climàtics semblants a aquells als quals estan exposades les poblacions europees originals. Per tant, les poblacions del Vell Món ens proporcionen els patrons bàsics de les trajectòries evolutives representades per la variació latitudinal de les freqüències dels ordenaments cromosòmics, i en les poblacions del Nou Món (tant les d’Amèrica del Nord com del Sud) les podem considerar com «rèpliques» naturals d’un «gran experiment evolutiu» (Ayala et al., 1989). De fet, fins aleshores no estava clar si les clines latitudinals que presenten molts ordenaments cromosòmics a Europa eren degudes a la selecció natural (eren adaptatives) o be es podien explicar per causes històriques. Vegem un exemple d’aquesta última possibilitat: suposem que apareix un ordenament cromosòmic en una localitat. Al principi, si l’ordenament no es perd, s’estendrà entre els individus descendents d’aquell progenitor on s’ha produït la mutació. Per tant, la freqüència de l’ordenament serà més alta en la seva àrea d’origen. Evidentment que l’ordenament es pot estendre a d’altres àrees més allunyades, per migració, però aleshores esperaríem que la seva
freqüència anés disminuint a mesura que ens allunyem de l’àrea d’origen, és a dir, obtindríem una clina de la seva freqüència, la qual no seria deguda a factors selectius, sinó a la «història» demogràfica (també a processos de deriva) de l’ordenament. La colonització d’Amèrica per part de D. subobscura ha proporcionat una oportunitat única per determinar si el polimorfisme cromosòmic de l’espècie és adaptatiu. Molt pocs anys després de la colonització, es va analitzar el polimorfisme cromosòmic de les poblacions colonitzadores (al 1981 a Amèrica del Sud, i el 1985-1986 a Amèrica del Nord); es va detectar una evolució sorprenentment ràpida a escala geogràfica (Prevosti et al., 1985, 1988). Fins i tot en aquestes anàlisis primerenques ja s’havien desenvolupat clines latitudinals de les freqüències d’alguns ordenaments, equivalents a les existents en l’àrea paleàrtica d’origen. Una segona anàlisi de poblacions sudamericanes, el 1986, suggeria que aquestes clines encara estaven evolucionant i es feien més semblants encara a les existents a Europa (Prevosti et al., 1990). L’aparició d’aquestes clines al Nou Món no es pot explicar per causes històriques i, per tant, cal admetre’n el caràcter adaptatiu. L’evolució d’aquestes clines havia estat, doncs, molt ràpida i predictible —en el sentit que, coneixent les clines europees, es pot «predir» el possible desenvolupament de clines equivalents en àrees geogràfiques noves amb gradients climàtics semblants. Tanmateix, a les àrees colonitzades no s’han desenvolupat només clines latitudinals de les freqüències dels ordenaments cromosòmics; també s’ha detectat l’aparició de clines paral·leles a les europees en d’altres caràcters. Concretament, en les poblacions de D. subobscura del Vell Món, la grandària del cos —mesurada mitjançant la longitud de l’ala de la mosca— incrementa de manera clinal amb la latitud. Una dècada després de la colonització no
La microevolució en acció: marcadors genètics del canvi climàtic 191
es van detectar encara clines equivalents en les poblacions americanes (Pegueroles et al., 1995), però dues dècades després ja es va detectar una clina per a la grandària del cos a les poblacions nord-americanes (Huey et al., 2000) equivalent a l’europea. Aquesta taxa d’evolució morfològica a escala intercontinental és de les més ràpides que s’han detectat. Cal remarcar que, encara que al Vell Món i al Nou Món la longitud de l’ala de les mosques incrementa amb la latitud —i, per tant, també la grandària del cos— en ambduess regions ho fa mitjançant l’increment de diferents segments de les venes alars. ELS ORDENAMENTS CROMOSÒMICS COM A MARCADORS GENÈTICS DEL CANVI CLIMÀTIC GLOBAL El canvi climàtic està alterant les distribucions geogràfiques, les abundàncies, les fenologies i les interaccions biòtiques entre els organismes. També pot alterar la composició genètica de les espècies, però la quantificació d’aquest fet requereix disposar de dades genètiques obtingudes en sèries temporals. Els registres històrics de les freqüències d’ordenaments cromosòmics permeten avaluar la sensibilitat genètica als canvis climàtics i a d’altres factors ambientals. En el cas de l’espècie D. subobscura es disposava de sèries temporals de dades (tretze a quaranta-sis anys) de les freqüències d’ordenaments cromosòmics i de dades de temperatura en vint-i-sis poblacions (tretze d’europees, set de nord-americanes i sis de sud-americanes). Vam realitzar una anàlisi (Balanyà et al., 2006) per comprovar si les temperatures havien augmentat al llarg d’aquests anys en aquestes localitats i també per si havien augmentat les freqüències d’aquells ordenaments cromosòmics típics de latituds càlides. Volíem in-
vestigar si la magnitud i direcció dels canvis genètics (canvis en les freqüències dels ordenaments) eren paral·lels als canvis detectats en la temperatura, i si això succeïa als tres continents. Les dades històriques de les freqüències dels ordenaments de les vint-i-sis poblacions analitzades les vam obtenir de dades publicades per diferents autors. Entre 1997 i 2004 vam obtenir les dades recents, en mostres de les mateixes poblacions (o molt properes) durant la mateixa època de l’any en què havien estat obtingudes les dades històriques. En totes les mostres es va analitzar el contingut en ordenaments cromosòmics per a cadascun dels cinc cromosomes acrocèntrics de l’espècie. En total, cinquanta ordenaments diferents, incloent-hi els vint-i-un que presenten clines latitudinals al Vell Món i els divuit ordenaments presents en les poblacions colonitzadores d’Amèrica. En lloc d’analitzar els canvis de les freqüències dels ordenaments individuals, vam desenvolupar un índex cromosòmic (ChPC1) basat en les freqüències (pi) de tots els ordenaments dels cinc cromosomes acrocèntrics, amb una anàlisi de components principals amb la utilització de les freqüències centrades i transformades (mitjançant la transformació 2 pi) dels ordenaments dels cinc cromosomes per a les cinquantadues mostres (vint-i-sis d’històriques i vinti-sis de recents). El primer component principal obtingut, que explica el 45,8 % de la variabilitat total, és el que hem utilitzat com a índex cromosòmic. Per determinar si hi havia hagut un canvi de la temperatura durant el temps transcorregut entre les mostres històriques i les recents, vam desenvolupar també un índex de temperatura (TPC1), basat en les temperatures mitjanes mensuals registrades a les estacions meteorològiques més properes a les localitats de captura durant els quatre anys anteriors a cada mostra. Com en el cas dels ordenaments
192 L. Serra
cromosòmics, vam realitzar posteriorment una anàlisi de components principals utilitzant les mitjanes mensuals de temperatura, centrades, per a les cinquanta-dues mostres. El primer component principal obtingut, que explica el 79,8 % de la variabilitat total, és el que hem utilitzat com a índex de temperatura (TPC1). L’índex de temperatura, TPC1, com cal esperar, es correlaciona negativament amb la latitud als tres continents (vegeu la figura 6). Ha incrementat significativament entre les mostres històriques i les recents, i això també ho ha fet als tres continents (vegeu la figura 6), la qual cosa és consistent amb l’existència d’un escalfament global. De fet, TPC1 ha augmentat en vint-i-dues de les vint-i-sis localitats analitzades. Els canvis són més grans a Europa, la qual cosa pot ser deguda al fet que al Vell Món ha transcorregut un període de temps més llarg entre les captu-
Figura 6. L’índex de temperatura (T PC1) és inversament correlacionat amb la latitud en les vint-i-sis localitats analitzades als tres continents, i ha augmentat significativament entre les mostres històriques (corbes de regressió discontínues) i les mostres recents (cercles negres, corbes de regressió contínues). Les localitats europees es representen amb símbols de color negre, les d’Amèrica del Nord, de color vermell, i les d’Amèrica del Sud, de color blau. Les corbes de regressió corresponen a polinomis ortogonals de segon grau.
res de les mostres històriques i les recents, i també a l’existència d’un ventall més ampli de climes. L’índex cromosòmic està inversament relacionat no solament amb la latitud (vegeu la figura 7), sinó també amb TPC1 als tres continents; per tant, serveix com a indicador genètic del clima local. En vinti-quatre de les vint-i-sis poblacions analitzades, els ordenaments cromosòmics associats a latituds càlides (valors alts de ChPC1), han augmentat de freqüència entre les mostres històriques i les recents. En una localitat determinada, les freqüències dels ordenaments i la temperatura han esdevingut més «equatorials». Quan s’escala la magnitud d’aquests canvis en termes equivalents de graus de latitud, els canvis observats en les freqüències dels ordenaments i la temperatura als tres continents es poden considerar equivalents al desplaçament de les mostres històriques ~1° de latitud més a prop de l’equador.
Figura 7. L’índex cromosòmic (Ch PC1) està inversament relacionat amb la latitud i ha augmentat entre les mostres històriques (corbes de regressió discontínues) i les mostres recents (corbes de regressió contínues). Les localitats europees es representen amb símbols de color negre, les d’Amèrica del Nord, de color vermell, i les d’Amèrica del Sud, de color blau. Les corbes de regressió corresponen a polinomis ortogonals de segon grau.
La microevolució en acció: marcadors genètics del canvi climàtic 193
Veiem, doncs, que aquest canvi genètic ha estat excepcionalment ràpid i detectable fins i tot en mostres separades tan sols dues dècades. En altres insectes també s’han detectat canvis genètics paral·lels al canvi climàtic (Umina et al., 2005), encara que a una escala geogràfica més limitada. Fins ara no és clar si els canvis observats reflecteixen una selecció local, una invasió progressiva dels genotips procedents de latituds més baixes, o les dues coses alhora. La gran qüestió que queda pendent és conèixer, a escala molecular, quins són els gens, les seqüències reguladores o les interaccions gèniques responsables del valor adaptatiu del polimorfisme cromosòmic per inversions, sense excloure, evidentment, els patrons epigenòmics i la seva regulació. Els ordenaments cromosòmics poden afectar els patrons d’expressió gènica mitjançant el canvi de posició de seqüències reguladores (Navarro et al., 2005) i poden tenir un efecte directe i indirecte sobre l’expressió de gens lligats (Marquès-Bonet et al., 2004). BIBLIOGRAFIA Anderson, W. W.; Dobzhansky, T.; Kastritsis, C. D. (1967). «Selection and inversion polymorphism in experimental populations of Drosophila pseudoob scura initiated with chromosomal constitutions of natural populations». Evolution, 21: 664-671. Ayala, F. J.; Serra, L.; Prevosti, A. (1989). «A grand experiment in evolution: the Drosophila subobscu ra colonization of the Americas». Genome, 31: 246255. Balanyà, J.; Oller, J. M.; Huey, R. B.; Gilchrist, G. W.; Serra, L. (2006). «Global genetic change tracks global climate warming in Drosophila subobscura». Science, 313: 1773-1775. Balanyà, J.; Serra, L.; Gilchrist, G. W.; Huey, R. B.; Pascual, M.; Mestres, F.; Solé, E. (2003). «Evolutionary pace of chromosomal polymorphism in colonizing populations of Drosophila subobscura: An evolutionary time series». Evolution, 57: 18371845. Brncic, D. (1957). «Chromosomal polymorphism in
natural populations of Drosophila pavani». Chromo soma, 8: 699-708. Cáceres, M.; Ranz, J. M.; Barbadilla, A.; Long, M.; Ruiz, A. (1999). «Generation of a widespread Dro sophila inversion by a transposable element». Sci ence, 285: 415-418. Dobzhansky, T. (1948). «Genetics of natural populations XVIII. Experiments on chromosomes of Dro sophila pseudoobscura from different geographic regions». Genetics, 33: 588-602. — (1962). «Rigid vs. flexible chromosomal polymorphisms in Drosophila». Amer. Natur., 96: 321-328. Fontdevila, A.; Moya, A. (2003). Evolución: origen, adaptación y divergencia de las especies. Madrid: Síntesis. Huey, R. B.; Gilchrist, G. W.; Carlson, M. L.; Berrigan, D.; Serra, L. (2000). «Rapid evolution of a geographic cline in an introduced fly». Science, 287: 308-309. Krimbas, C. B. (1964). «The genetics of Drosophila sub obscura populations. I. Inversion polymorphism in populations of southern Greece». Evolution, 18: 541-552. — (1992). «The inversion polymorphism of Drosophi la subobscura» A: Krimbas, C. B.; Powell, J. R. [ed.]. Drosophila inversion polymorphism. Boca Raton: CRC Press, 127-220. Kunze-Mühl, E.; Müller, E. (1958). «Weitere Untersuchungen über die chromosomale Struktur und die natürlichen Strukturtypen von Drosophila subob scura Coll». Chromosoma, 9: 559-570. Kunze-Mühl, E.; Müller, E.; Sperlich, D. (1958). «Qualitative, quantitative und jahreszeitliche Untersuchungen über den chromosomalen Polymorphismus natürlicher Populationen von Drosophila subobscura in der Umgebung von Wien». Z. Ver erbungsl., 89: 636-646. Mainx, F.; Koske, T.; Smital, E. (1953). «Untersuchungen über die chromosomale Struktur europäischer Vertreter der Drosophila obscura Gruppe». Z. Indukt. Abstammungs. Vererbungsl., 85: 354-372. Marquès-Bonet, T.; Cáceres, M.; Bertranpetit, J.; Preuss, T. M.; Thomas, J. W.; Navarro, A. (2004). «Chromosomal rearrangements and the genomic distribution of gene expression divergence in humans and chimpanzees». Trends. Genet., 20: 524529. Navarro, A.; Betran, E.; Barbadilla, A.; Ruiz, A. (1997). «Recombination and gene flux caused by gene conversion and crossing over in inversion heterokaryotypes». Genetics, 146: 695-709. Navarro, A.; Gazave, E. (2005). «Inversions with classical style and trendy lines». Nature Genetics, 37: 115-116.
194 L. Serra
Orengo, D. J.; Prevosti, A. (1996). «Temporal changes in chromosomal polymorphism of Drosophila sub obscura related to climatic changes». Evolution, 50: 1346-1350. Painter, T. S. (1933). «A new method for the study of chromosome rearrangements and the plotting of chromosome maps». Science, 78: 585-586. Pegueroles, G.; Papaceit, M.; Quintana, A.; Guillén, A.; Prevosti, A.; Serra, L. (1995). «An experimental study of evolution in progress: clines for quantitative traits in colonizing and Palearctic populations of Drosophila». Evol. Ecol., 9: 453-465. Pentzos-Daponte, A. (1964). «Qualitative und quantitative Untersuchungen über den chromosomalen Polymorphismus natürlicher Populationen von Drosophila subobscura in der Umgebung von Thessaloniki – Griechenland». Z. Vererbungsl., 95: 129144. Prevosti, A. (1964). «Chromosomal polymorphism in Drosophila subobscura populations from Barcelona (Spain)». Genet. Res., 5: 27-38. — (1966). «Chromosomal polymorphism in western Mediterranean populations of Drosophila subobscu ra». Genet. Res., 7: 149-158. Prevosti, A.; Ribó, G.; Serra, L.; Aguadé, M.; Bala nyà, J.; Monclús, M.; Mestres, F. (1988). «Colonization of America by Drosophila subobscura: Experiment in natural populations that supports the adaptive role of chromosomal-inversion polymorphism». Proc. Natl. Acad. Sci. USA, 85: 5597-5600. Prevosti, A.; Serra, L.; Ribó, G.; Aguadé, M.; Sagarra, E.; Monclús, M.; García, M. P. (1985). «The colonization of Drosophila subobscura in Chile. II. Clines in the chromosomal arrangements». Evolu tion, 39: 838-844. Prevosti, A.; Serra, L.; Segarra, C.; Aguadé, M.; Ribó,
G.; Monclús, M. (1990). «Clines of chromosomal arrangements of Drosophila subobscura in South America evolve closer to Old World patterns». Ev olution, 44: 218-221. Rodríguez-Trelles, F.; Alvarez, G.; Zapata, C. (1996). «Time-series analysis of seasonal changes of the O inversion polymorphism of Drosophila subobscura». Genetics, 142: 179-187. Rodríguez-Trelles, F.; Rodríguez, M. A. (1998). «Rapid microevolution and loss of chromosomal diversity in Drosophila in response to climate warming». Evol. Ecol., 12: 829-838. Rozas, J.; Aguadé, M. (1994). «Gene conversion is involved in the transfer of genetic information between naturally occurring inversions of Drosophi la». Proc. Natl. Acad. Sci. USA, 91: 11517-11521. Sinnot, E. W.; Dunn, L. C.; Dobzhansky, T. (1958). Prin ciples of genetics. Nova York: McGraw-Hill, 278. Solé, E.; Balanyà, J.; Sperlich, D.; Serra, L. (2002). «Long-term changes of the chromosomal inversion polymorphism of Drosophila subobscura. I. Mediterranean populations from South-western Europe». Evolution, 56: 830-835. Stumm-Zollinger, E. (1953). «Vergleichende Untersuchungen über die Inversionshäufigkeit bei Dro sophila subobscura in Populationen der Schweiz und Südwesteuropas». Z. indukt. Abstamm.-u. Ver erb.-Lehre, 85: 382-407. Umina, P. A.; Weeks, A. R.; Kearney, M. R.; McKechnie, S. W.; Hoffmann, A. A. (2005). «A rapid shift in a classic clinal pattern in Drosophila reflecting climate change». Science, 308: 691-693. Wright, S.; Dobzhansky, T. (1946). «Experimental reproduction of some of the changes caused by natural selection in certain populations of Drosophila pseudoobscura». Genetics, 31: 125-156.
DOI: 10.2436/20.1501.02.85
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 195-204
COMPLINT UNA INTUÏCIÓ DE DARWIN: GENÈTICA HUMANA I LLENGÜES David Comas, Elena Bosch i Francesc Calafell Institut de Biologia Evolutiva (UPF-CSIC), Departament de Ciències Experimentals i de la Salut, Universitat Pompeu Fabra i CIBER de Salud Pública. Adreça per a la correspondència: Francesc Calafell. Unitat de Biologia Evolutiva, Departament de Ciències Experimentals i de la Salut, Universitat Pompeu Fabra. Doctor Aiguader, 88. 08003 Barcelona. Adreça electrònica: francesc.calafell@upf.edu. RESUM Les similituds entre la manera com s’hereten i evolucionen els gens i les llengües han promogut l’interès en l’anàlisi conjunta d’ambdós camps. La correlació entre gens i llengües va ser demostrada per primer cop per Cavalli-Sforza i col·laboradors en comparar un arbre construït amb marcadors genètics clàssics amb un arbre lingüístic de les llengües. S’han formulat diverses crítiques a aquest mètode, i se n’han descrit nombroses excepcions. S’ha demostrat que el factor més important que determina la correlació de gens i llengües és la geografia. Nogensmenys, la informació proporcionada per la genètica i la lingüística, ensems amb la proporcionada per altres disciplines, ens permetrà reconstruir la història de la humanitat. Paraules clau: diversitat genètica, diversitat lingüística, correlació gens-llengües, coevolució gens-cultura, Cavalli-Sforza. FULFILLING ONE OF DARWIN’S INTUITIONS: HUMAN GENETICS AND LANGUAGES SUMMARY The similarities between the mode of inheritance and evolution of genes and languages have fostered interest in the joint analysis of both disciplines. The correlation between genes and languages was firstly demonstrated by Cavalli-Sforza and collaborators comparing a tree build from ‘classical’ genetic markers to a linguistic tree of languages. Several criticisms to this correlation have been raised and a large number of exceptions have been described. It has been shown that the most plausible factor that influences in the cor-
196 D. Comas, E. Bosch i F. Calafell
relation of genes and languages is geography. However, the information provided by genetics and linguistics, as well as the one provided by other disciplines, will allow us to reconstruct the history of humankind. Key words: genetic diversity, linguistic diversity, gene-languages correlation, gene-culture coevolution, Cavalli-Sforza. If we possessed a perfect pedigree of mankind, a genealogical arrangement of the races of man would afford the best classification of the various languages now spoken throughout the world. On the origin of species, capítol xiii. INTRODUCCIÓ El lligam entre l’evolució de l’espècie humana i les llengües ja fou assenyalat per Charles Darwin a L’origen de les espècies (1859), on suggerí que la reconstrucció de l’arbre evolutiu humà permetria refinar la classificació de les llengües humanes. Les dades provinents de la paleoantropologia i el desenvolupament de l’antropologia molecular ens han permès reconstruir l’arbre evolutiu dels humans actuals de manera molt acurada. En canvi, la reconstrucció de l’arbre de les llengües, especialment en les seves branques més profundes, roman poc detallat i controvertit, a causa de l’evolució més ràpida de les llengües i, com veurem més endavant, dels diferents processos que fan que l’evolució de les llengües s’aparti de la manera arborescent estricta que presenta l’evolució genètica. Sens dubte, la parla és un dels trets que defineix la humanitat. No és l’objectiu d’aquest article descriure les característiques anatòmiques, fisiològiques, neurològiques i, en definitiva, genètiques, que fan possible la parla humana, ja que ens centrarem no en allò que gairebé tots els humans compartim (és a dir, la capacitat de parlar), sinó en allò que és diferent entre
humans (val a dir, quina llengua parlem). Tanmateix, resumirem algunes de les troballes recents més importants sobre l’evolució de la parla. S’ha trobat que el gen FOXP2 està implicat en la capacitat lingüística (Lai et al., 2001), i les anàlisis moleculars assenyalen que aquest gen mostra adaptació recent en el llinatge humà (Enard et al., 2002). Aquestes anàlisis han mostrat que aquest gen ha sofert adaptació recent en els humans, comparant-ho amb altres primats, cosa que suggereix que l’aparició i expansió dels humans moderns, fa dos-cents mil anys, podria haver estat impulsada per l’adquisició d’una parla sofisticada. Tanmateix, els resultats de l’anàlisi del DNA de dos neandertals (Krause et al., 2007) mostren que els al·lels derivats dels humans ja eren presents en els neandertals. Per tant, l’aparició d’aquests canvis en el gen FOXP2 és anterior a la separació dels llinatges que van portar als neandertals i als humans moderns. La parla humana és una característica universal: tots els grups humans han desenvolupat una llengua sofisticada, encara que moltes llengües no hagin disposat d’un sistema d’escriptura fins a temps molt recents. Gairebé tots els humans tenim la mateixa aptitud biològica per aprendre una llengua. En canvi, no està genèticament determinat quina llengua concreta es parla, i cada individu aprèn el vocabulari i la gramàtica d’una llengua específica segons en quin context cultural neix. Això és particularment evident en les adopcions internacionals: els nens adoptats aprenen fàcilment la llengua dels seus nous pares. Les llengües són part de la cultura humana i, per
Complint una intuïció de Darwin: genètica humana i llengües 197
tant, es transmeten de pares a fills, de generació en generació, de la mateixa manera que es transmeten altres trets culturals com la religió, la tecnologia o l’ètica. Aquest fet té implicacions dràstiques en la correlació entre gens i llengües. A causa del seu mode cultural d’herència i transmissió, les llengües es poden influir, modificar o reemplaçar fàcilment per altres llengües, i aquests canvis poden passar ràpidament, en menys d’una generació. La reconstrucció de la història evolutiva comuna de dos individus, grups, poblacions o espècies es pot dur a terme utilitzant les eines de la genètica evolutiva. El principi bàsic, en la seva forma més simple, és el següent: com més semblants genèticament són dues entitats, més recent és el seu avantpassat comú. Aquest principi bàsic implica que les diferències genètiques s’acumulen al llarg del temps i, per tant, com més temps ha passat des de la separació de dues entitats, més grans seran les diferències genètiques entre aquestes. Paral·lelament, la similitud lingüística que observem actualment entre les llengües apunta al seu origen comú en una llengua ancestral o protollengua. A més dels paral·lelismes entre genètica i lingüística, la substitució lingüística pot ser més ràpida que el canvi genètic, ja que la transmissió genètica és vertical (és a dir, de pares a fills), mentre que la transmissió lingüística pot ser vertical o horitzontal, és a dir, d’un individu a un altre, emparentats o no, dins d’una població. A més, alguns processos, tant en genètica com en lingüística, poden distorsionar les diferències entre poblacions, i poden fer que poblacions allunyades apareguin molt més properes entre si del que són realment. En genètica, l’evolució convergent, l’homoplàsia, l’adaptació o la mescla poden disminuir o esborrar les diferències genètiques acumulades al llarg del temps des de la separació de dues poblacions. Per exemple, poblacions com els
centreafricans i els aborígens australians, que es van separar fa més de cinquanta mil anys, poden presentar adaptacions genètiques a la radiació solar semblants en gens relacionats amb el color de la pell, malgrat els seus remots orígens comuns. De la mateixa manera, processos com els manlleus lingüístics o la substitució d’idiomes poden mostrar similituds lingüístiques degudes a esdeveniments recents no relacionats amb la separació de les llengües. Ambdues disciplines, la genètica i la lingüística, utilitzen eines semblants per a la reconstrucció de les històries dels gens i les llengües, respectivament. Les distàncies genètiques i lingüístiques es poden calcular de diferents maneres en ambdues disciplines i es poden representar després com a arbres. Les distàncies genètiques es poden calcular a partir de diferències en les freqüències al·lèliques o de diferències en seqüències de DNA. De manera semblant, els lingüistes poden usar llistes de mots comuns, com la llista de Swadesh (vegeu la taula 1) per quantificar les diferències entre idiomes. Encara que els arbres produeixen una representació visual atractiva de les dades, imposen un model bifurcant a una matriu de distàncies que pot no presentar aquesta estructura, especialment entre entitats estretament relacionades. A més, els arbres no poden representar processos com els manlleus lingüístics o la mescla entre poblacions, de manera que l’aplicació dels arbres és limitada i la seva interpretació pot ser esbiaixada. De totes maneres, si el propòsit de l’anàlisi és determinar si existeix una correlació entre gens i llengües, no cal utilitzar arbres: una correlació entre les matrius de distàncies genètiques i lingüístiques es pot calcular directament a partir de les matrius mateixes, mitjançant el test de Mantel. A més, en aquest tipus d’anàlisi es pot descomptar l’efecte de variables que poden confondre, com la distància
198 D. Comas, E. Bosch i F. Calafell Taula 1. Un subconjunt de vint-i-cinc paraules de la llista de Swadesh, en català, francès, italià, llatí, anglès, holandès, alemany i suec. Català jo tu, vostè, vós (formal) ell nosaltres vosaltres, vostès (formal) ells, elles aquest aquell aquí allà qui què on quan com
Francès je tu, vous (formal) il nous vous
Italià io tu, lei (formal) lui, egli noi voi
Llatí ego tu
ils, elles ceci cela ici là qui quoi où quand comment
loro, essi questo quello qui, qua là chi che dove quando come
no tot molts alguns, uns
ne...pas tout plusieurs quelques
non tutto molti alcuni
poc altres un dos tres quatre
peu autre un deux trois quatre
pochi altro uno due tre quattro
ii, eae hic, is ille hic ibi quis quid ubi quando quam, quomodo non omnis multi aliqui, aliquot pauci alter, alius unus duo tres quattuor
is, ea nos vos
geogràfica; podeu veure exemples d’aquesta aproximació a Rosser et al. (2000), Rubicz et al. (2002), Karafet et al. (2002), Ayub et al. (2003) i Wood et al. (2005), entre altres. CORRELACIÓ ENTRE GENS I LLENGÜES Les expansions demogràfiques humanes, impulsades per innovacions tecnològiques o culturals, poden implicar la dispersió dels individus i, per tant, l’expansió dels
Anglès I you (s.), thou he we you
Holandès ik jij, je, U (formal) hij wij, we jullie
they this that here there who what where when how
zij, ze Deze, dit die, dat hier daar wie wat waar wanneer hoe
not all many some
niet al, alle veel enkele, sommige weinig ander een twee drie vier
few other one two three four
Alemany ich du, Sie (formal) er wir ihr, Sie (formal) sie dieses jenes hier dort wer was wo wann wie
Suec jag du
nicht alle viele einige
inte, ej alla många några, vissa få annan ett två tre fyra
wenige andere eins zwei drei vier
han vi ni de dethär detdär här där vem vad var när hur
seus gens i les seves llengües a nous territoris. La colonització d’un nou territori com a conseqüència d’una expansió demogràfica implica inicialment una similitud genètica entre els colonitzadors, els quals poden divergir posteriorment. Per tant, podem inferir que les poblacions extenses que comparteixen una llengua o un grup de llengües estretament emparentades poden ser el resultat d’expansions de poblacions en què encara no ha passat prou temps per a la divergència lingüística. De la mateixa manera, es pot inferir que les poblacions que ocu-
Complint una intuïció de Darwin: genètica humana i llengües 199
pen un cert territori i que parlen llengües diverses de la mateixa família lingüística presenten un origen comú més antic (vegeu la figura 1). Alguns exemples ben coneguts de l’expansió de famílies lingüístiques són els casos de l’indoeuropeu, el bantu o l’austronesi. Aquestes expansions lingüístiques es correlacionen gairebé perfectament amb expansions genètiques, i les poblacions que parlen actualment aquestes llengües també estan estretament emparentades genèticament. Moltes d’aquestes expansions van ser provocades per la dispersió dels productors d’aliments i de les seves llengües cap als territoris ocupats per poblacions de caçadors-recol·lectors. Com a resultat d’aquest procés, la distribució d’aquestes famílies lingüístiques (i gens) és àmplia. La distribució de les famílies indoeuropea, sinotibetana, bantu i austronèsia s’ha associat amb les expansions de l’agricultura des de l’Orient Mitjà, el nord de la Xina, la frontera entre Nigèria i el Camerun, i el sud de la Xina, respectivament. Després d’aquestes expansions, les llengües (i els gens) es poden haver començat de diferenciar i, per tant, el que observem avui és un grup de distribucions contigües de llengües i gens relacionats. Tanmateix, l’argument de l’expansió conjunta dels gens i les llengües és tan vàlid com una de les seves principals premisses, val a dir, la difusió de l’agricultura, en què la innovació cultural s’escampa a través de la migració de les poblacions implicades que, per tant, escampen també els seus gens. En canvi, altres processos com l’aculturació, que implica la difusió d’innovacions culturals sense el reemplaçament de les poblacions, poden comportar una substitució cultural (incloent-hi probablement la lingüística) sense un recanvi de gens. Les expansions neolítiques constitueixen una categoria de moviments poblacionals que poden haver escampat simultàniament gens i llengües. Renfrew (1994) va
proposar un marc teòric general en què la localització geogràfica actual de les principals famílies lingüístiques està lligada a un o més d’un petit conjunt de moviments (pre)històrics de població. Breument: a) algunes famílies lingüístiques (khoisànid, nilosaharià, caucàsic, australià, indopacífic i amerindi; vegeu la figura 1) deuen les seves localitzacions geogràfiques només a la dispersió inicial dels humans anatòmicament moderns en el paleolític superior; b) les dispersions dels humans neolítics haurien escampat les famílies nigerokurdufaniana, afroasiàtica, indoeuropea, elamodravídica, sinotibetana i austronesiana; c) un clima més suau a les latituds boreals podria haver portat la colonització de les regions més septentrionals i l’expansió de les famílies uràlica, txuktxikamtxatka, nadené i eskimoaleutiana i d) moviments posteriors sota un model de dominància d’elit, és a dir, en què una minoria ben organitzada pot conquerir un territori i imposar una cultura i una llengua; aquest fou el cas de l’expansió de la família altaica des d’un bressol relativament reduït a l’Àsia Central, el de l’indoeuropeu al subcontinent indi, o el de la introducció de la família indoeuropea mateixa a gran del part del món en la colonització europea postcolombina. L’expansió conjunta de l’agricultura i de les poblacions (o, de fet, de qualsevol dels processos a a c anteriors) pot crear una correlació entre les distàncies o els arbres evolutius de gens o llengües. Cavalli-Sforza (1997) i Cavalli-Sforza et al. (1998) foren els primers a demostrar aquesta correlació entre gens i llengües. Van recollir freqüències al·lèliques de cent vint polimorfismes genètics clàssics (és a dir, d’aquells que es detecten en els productes dels gens i no pas en els gens mateixos, com els grups sanguinis i altres polimorfismes proteics) en quaranta-dues poblacions d’arreu del món, van calcular-ne les distàncies genètiques i les
200 D. Comas, E. Bosch i F. Calafell
van representar en forma d’arbre. A conti- amb una tercera variable. El factor més vernuació, van comparar aquest arbre genètic semblant que podria influir en la correlació amb un de lingüístic (Ruhlen, 1991), i es va entre gens i llengües és la geografia: si els mostrar una alta correlació entre ambdós gens estan correlacionats amb la geografia arbres (vegeu la figura 2). Van trobar algu- perquè els moviments humans, les expansines excepcions a aquesta correlació global, ons i les migracions estan constretes per les com algunes poblacions pertanyents a la característiques de la geografia, i si les llenmateixa família lingüística però genètica- gües es difonen de manera limitada per les ment molt divergents o, al contrari, pobla- barreres geogràfiques mateixes, llavors els cions genèticament properes que parlaven gens i les llengües podrien estar correlaciollengües de famílies diferents. Tanmateix, nats entre si perquè ambdós estarien corrediversos autors van criticar les dades i els lacionats amb la geografia. Algunes dades mètodes usats per Cavalli-Sforza i els seus genètiques han mostrat una alta correlació col·laboradors (Bateman et al., 1990). Alguns amb la geografia però no amb les llengües. dels punts criticats foren la definició arbi- Per exemple, Rosser et al. (2000) demostratrària de les poblacions, la classificació lin- ren que la diversitat genètica actual en el güística utilitzada, l’escassa mida d’algunes cromosoma Y a Europa mostra un patró climostres i el mètode per a lafamílies reconstrucnal altament correlacionat amb la geografia Figura 1. Mapa de les usat principals lingüístiques, adaptat de Ruhlen (1991). Les ció de l’arbre. però no amb les llengües, cosa que suggeria les nombroses excepcions descriexpansió des de l’Orient Mitjà amb hefamíliesMalgrat lingüístiques esatn acolorides com a la una figura 2. tes, la correlació entre gens i llengües con- terogeneïtats lingüístiques. tinua sent bona. Però aquesta correlació es S’ha trobat una correlació diferencial enpodria atribuir a factors diferents d’un lli- tre gens i llengües segons el marcador gegam directe entre gens i llengües, com po- nètic utilitzat, cosa que presenta implicacidria ser la correlació d’ambdues entitats ons potents. S’ha vist que la correlació entre
Figura 1. Mapa de les principals famílies lingüístiques, adaptat de Ruhlen (1991). Les famílies lingüístiques estan acolorides com a la figura 2. Les àrees blanques dins dels continents representen zones deshabitades o isolats lingüístics.
Complint una intuïció de Darwin: genètica humana i llengües 201
la diversitat genètica trobada en el cromo- individu se sol anomenar la llengua matersoma Y i la diversitat lingüística és més al- na, la millor correlació de la diversitat linta que no pas la correlació entre DNA mi- güística amb la diversitat genètica transmetocondrial i llengües (Poloni et al., 1997; sa pels homes suggereix que llengua paterna Pérez-Lezaun et al., 1999; Bosch et al., 2006). seria una expressió més adequada. Aquest fet es podria explicar per les diferents taxes de migració masculina i femeni- genètica (esquerra) i lingüística (dreta). L Figure 2. Arbres que relliguen la diversitat na. S’ha postulat (Seielstad et al., 1998) que PAISATGES GENÈTICS la taxa de migració és més alta I LINGÜÍSTICS àrees blanques dins dels femenina continents representen zones deshabitades o isolats lingüístic que la masculina, cosa que podria explicar per què els llinatges masculins són espaciLa composició genètica de les poblacions, alment més heterogenis que els llinatges fe- és a dir, les seves freqüències al·lèliques o menins. Encara que la llengua pròpia d’un haplotípiques en els locus rellevants, can-
Figura 2. Arbres que relliguen la diversitat genètica (esquerra) i lingüística (dreta).
202 D. Comas, E. Bosch i F. Calafell
via en l’espai. Òbviament, un determinant principal de la taxa de canvi són els obstacles geogràfics al moviment de les poblacions (i, per tant, al flux gènic) com els mars i les serralades. Tanmateix, les diferències lingüístiques poden tenir també un paper en la creació del paisatge genètic, tot dificultant l’aparellament de persones que parlin llengües diferents i reforçant l’endogàmia d’un grup. Barbujani i Sokal (1990) analitzaren la taxa de canvi en l’espai de les freqüències al·lèliques a Europa, determinaren on era més pronunciat el canvi genètic, i trobaren que aquestes fronteres genètiques coincidien amb fronteres lingüístiques amb una probabilitat més gran de l’esperada si ambdós tipus de fronteres fossin independents entre si. Sovint, les barreres lingüístiques i genètiques coincidien en llocs on no hi havia barreres geogràfiques, cosa que implicava que les llengües havien restringit realment el flux gènic entre poblacions a Europa. En especial, es va trobar una clara frontera genètica al voltant dels bascos (Bertranpetit i Calafell, 1994), que no estan separats de la resta de la península Ibèrica per cap barrera geogràfica particularment dificultosa. Una aproximació similar es va aplicar a les poblacions d’Itàlia (Zei et al., 1993; en aquest cas, la diferenciació genètica es va estimar a partir dels cognoms, que es poden modelar com un sol locus del cromosoma Y amb molts al·lels), la Gran Bretanya (Falsetti i Sokal, 1993) i el Japó (Sokal i Thomson, 1998). EXCEPCIONS EN LA CORRELACIÓ ENTRE GENS I LLENGÜES La correlació entre gens i llengües ja es dóna per esperada i es pot considerar, fent un símil estadístic, com una hipòtesi nul· la; així, les excepcions a aquesta norma són més interessants i ens donen pistes sobre
les històries de moltes poblacions locals. Les excepcions en els estudis seminals de Cavalli-Sforza i col·laboradors foren atribuïdes als fenòmens de substitució lingüística o poblacional. Alguns exemples ben coneguts de substitució lingüística són els pigmeus, que parlen llengües del grup bantu o de la família nilosahariana, mentre que romanen clarament diferenciats genèticament dels parlants no pigmeus d’aquests grups lingüístics. Els exemples de substitució lingüística són abundants en les antigues colònies europees, on molts grup nadius van aconseguir retenir la seva diferenciació genètica, mentre les seves llengües eren reemplaçades per la de la metròpoli colonial. Aquests són exemples del model de dominància d’elit en el marc general de Renfrew. En aquest cas, un grup limitat d’individus pren el control polític, social o religiós d’una població general i imposa una llengua. En conseqüència, la substitució lingüística pot tenir lloc sense la substitució genètica de la població. Aquest procés és possible només amb poblacions molt estructurades amb una jerarquia social, en què el reemplaçament d’un petit nombre d’individus del cim de la piràmide social pot afectar la població general. Un exemple addicional d’aquest model de dominància d’elit el constitueix la llengua túrquica parlada actualment a Turquia. En el segle xi, tribus túrquiques provinents d’Àsia Central van imposar la seva llengua a les poblacions anatòliques, i van substituir el grec i altres llengües indoeuropees, algunes de les quals van desaparèixer. Actualment, la distribució geogràfica de les llengües indoeuropees és discontínua a causa de la substitució a Anatòlia, però la composició genètica dels turcs roman més propera a les poblacions de l’Orient Mitjà i Europa que no pas a les de l’Àsia Central (Calafell et al., 1996; Comas et al., 1996; Cinnioglu et al., 2004). De manera semblant, els
Complint una intuïció de Darwin: genètica humana i llengües 203
descendents culturals dels romans als Balcans, és a dir, els romanesos i els aromuns, ambdós parlants de llengües romàniques, són genèticament més semblants als balcànics parlants d’altres llengües (principalment eslaves) que no pas als italians (Bosch et al., 2006). L’anàlisi conjunta dels gens i les llengües es troba en la intersecció del coneixement fornit per diverses disciplines diferents de la genètica i la lingüística, com l’arqueologia, les ciències cognitives i la paleontologia, entre altres. La conseqüència final de treure l’entrellat de les relacions entre gens i llengües ens portarà no solament a la reconstrucció de les migracions i dels intercanvis culturals entre poblacions, sinó també a la singular història evolutiva de la nostra espècie, tal com Darwin havia intuït. BIBLIOGRAFIA Ayub, Q.; Mansoor, A.; Ismail, M. [et al.] (2003). «Reconstruction of human evolutionary tree using polymorphic autosomal microsatellites». Am. J. Phys. Anthrop., 122: 259-268. Barbujani, G.; Sokal, R. R. (1990). «Zones of sharp genetic change in Europe are also linguistic boundaries». Proc. Nat. Acad. Sci. USA, 87: 1816-1819. Bateman, R.; Goddard, I.; O’Grady, R. [et al.] (1990). «Speaking of forked tongues: the feasibility of reconciling human phylogeny and the history of language». Curr. Anthrop., 31: 1-13. Bosch, E.; Calafell, F.; González-Neira, A. [et al.] (2006). «Paternal and maternal lineages in the Balkans show a homogeneous landscape over linguistic barriers, except for the isolated Aromuns». Ann. Hum. Gen., 70: 459-487. Calafell, F.; Bertranpetit, J. (1994). «Principal component analysis of gene frequencies and the origin of the Basques». Am. J. Phys. Anthrop., 93: 201-215. Calafell, F.; Underhill, P.; Tolun, A.; Angelicheva, D.; Kalaydjieva, L. (1996). «From Asia to Europe: mitochondrial DNA sequence variability in Bulgarians and Turks». Ann. Hum. Gen., 60: 35-49. Cavalli-Sforza, L. (1997). «Genes, peoples, and languages». Proc. Nat. Acad. Sci. USA, 94: 7719-7724. Cavalli-Sforza, L.; Piazza, A.; Menozzi, P.; Moun-
tain, J. (1998). «Reconstruction of human evolution: bringing together genetic, archaeological, and linguistic data». Proc. Nat. Acad. Sci. USA, 85: 6002-6006. Cinnioglu, C.; King, R.; Kivisild, T. [et al.] (2004). «Excavating Y-chromosome haplotype strata in Anatolia». Hum. Gen., 114: 127-148. Comas, D.; Calafell, F.; Mateu, E.; Pérez-Lezaun, A.; Bertranpetit, J. (1996). «Geographic variation in human mitochondrial DNA control region sequence: the population history of Turkey and its relationship to the European populations». Mol. Biol. Evol., 13: 1067-1077. Darwin, C. (1859). On the Origin of Species. Londres: John Murray. Enard, W.; Przeworski, M.; Fisher, S. E. [et al.] (2002). «Molecular evolution of FOXP2, a gene involved in speech and language». Nature, 418: 869-872. Falsetti, A. B.; Sokal, R. R. (1993). «Genetic structure of human populations in the British Isles». Ann. Hum. Biol., 20: 215-229. Karafet, T. M.; Osipova, L. P.; Gubina, M. A. [et al.] (2002). «High levels of Y-chromosome differentiation among native Siberian populations and the genetic signature of a boreal hunter-gatherer way of life». Hum. Biol., 74: 761-789. Krause, J.; Lalueza-Fox, C.; Orlando, L. [et al.] (2007). «The derived FOXP2 variant of modern humans was shared with Neandertals». Curr. Biol., 17: 19081912. Lai, C. S.; Fisher, S. E.; Hurst, J. A.; Vargha-Khadem, F.; Monaco, A. P. (2001). «A forkhead-domain gene is mutated in a severe speech and language disorder». Nature, 413: 519-523. Pérez-Lezaun, A.; Calafell, F.; Comas, D. [et al.] (1999). «Sex-specific migration patterns in Central Asian populations, revealed by analysis of Y-chromosome short tandem repeats and mtDNA». Am. J. Hum. Gen., 65: 208-219. Poloni, E. S.; Semino, O.; Passarino, G. [et al.] (1997). «Human genetic affinities for Y-chromosome P49a,f/Taql haplotypes show strong correspondence with linguistics». Am. J. Hum. Gen., 61: 10151035. Renfrew, C. (1994). «World linguistic diversity». Sci. Am., 270: 116-123. Rosser, Z. H.; Zerjal, T.; Hurles, M. E. [et al.] (2000). Y-chromosomal diversity in Europe is clinal and influenced primarily by geography, rather than by language. Am. J. Hum. Gen., 67: 1526-1543. Rubicz, R.; Melvin, K. L.; Crawford, M. H. (2002). «Genetic evidence for the phylogenetic relationship between Na-Dene and Yeniseian speakers». Hum. Biol., 74: 743-760.
204 D. Comas, E. Bosch i F. Calafell
Ruhlen, M. (1991). A guide to the World’s languages, 2a ed. Stanford: Stanford University Press. Seielstad, M. T.; Minch, E.; Cavalli-Sforza, L. (1998). «Genetic evidence for a higher female migration rate in humans». Nat. Gen., 20: 278-280. Sokal, R. R.; Thomson, B. A. (1998). «Spatial genetic structure of human populations in Japan». Hum. Biol., 70: 1-22.
Wood, E. T.; Stover, D. A.; Ehret, C. [et al.] (2005). «Contrasting patterns of Y chromosome and mtDNA variation in Africa: evidence for sex-biased demographic processes». Eur. J. Hum. Gen., 13: 867-876. Zei, G.; Barbujani, G.; Lisa, A. [et al.] (1993). «Barriers to gene flow estimated by surname distribution in Italy». Ann. Hum. Gen., 57: 123-140.
DOI: 10.2436/20.1501.02.86
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 205-212
PALEOGENÒMICA Carles Lalueza-Fox Institut de Biologia Evolutiva (CSIC-UPF). Adreça per a la correspondència: Carles Lalueza-Fox. Institut de Biologia Evolutiva (CSIC-UPF). Dr. Aiguader, 88. 08003 Barcelona. Adreça electrònica: carles.lalueza@upf.edu. RESUM Des que es va recuperar per primer cop DNA d’una espècie extingida, l’any 1984, la paleogenòmica ha experimentat una autèntica revolució, gràcies a les tècniques d’ultraseqüenciació desenvolupades en els dos darrers anys. Això ha permès per primer cop assolir projectes genòmics d’espècies extingides com els mamuts i els neandertals. Aquest treball fa un repàs històric dels principals estudis paleogenòmics i es discuteixen les possibles aplicacions, així com les problemàtiques metodològiques. Paraules clau: evolució, metagenòmica, DNA antic, ultraseqüenciació. PALAEOGENOMICS SUMMARY Since the first DNA retrievals from an extinct species, in 1984, palaeogenomics has experienced a real revolution, thanks to the new ultrasequencing techniques developed in the last two years. These techniques have allowed the launching of genomic projects from extinct species such as mammoths and Neandertals. This work is an historical review of the main paleogenomic studies. Possible applications as well as methodological problems are also discussed. Key words: evolution, metagenomics, ancient DNA, ultrasequencing. INTRODUCCIÓ En els darrers anys, l’estudi del material genètic de restes del passat, que s’havia anomenat DNA antic o ancient DNA, i que va tenir inicis molt modestos pel que
fa al volum d’informació genètica recuperada, ha entrat de ple en l’era de la paleogenòmica. S’entén per paleogenòmica l’estudi de la seqüència, estructura i funció dels genomes extingits, tant del genoma nuclear, que comprèn la immensa majoria del
206 C. Lalueza-Fox
missatge genètic d’un organisme, com dels genomes citoplasmàtics, és a dir, el genoma mitocondrial (mtDNA) i el genoma cloroplàstic (cpDNA, present només en vegetals) (Hofreiter, 2008). A causa del major nombre de còpies d’aquests genomes citoplasmàtics comparat amb el genoma nuclear (fins a diversos milers per només dues còpies del DNA nuclear), durant gairebé vint anys la recerca en DNA antic s’ha basat a recuperar fragments de mtDNA o cpDNA d’espècies extingides amb finalitats filogenètiques. El primer estudi de DNA antic oficialment reconegut va tenir lloc el 1984, i va permetre la recuperació de dos fragments de mtDNA d’un tipus de zebra sud-africana extingida, el quagga, a partir d’un exemplar naturalitzat conservat al museu d’història natural de Mainz (Higuchi et al., 1984). El procediment tècnic emprat era extraordinàriament ineficient a causa de la seva inespecificitat; els investigadors van extreure DNA a partir d’una mostra de teixit i el van clonar en bacteris emprant fags com a vectors de clonatge. Després van examinar milers de clons fins a trobar-ne dos que contenien mtDNA i que posteriorment van identificar com a seqüències d’èquid per hibridació amb DNA de zebra. Com que el DNA nuclear està molt més representat a la cèl·lula que l’mtDNA, ara sabem que per cada clon que conté una seqüència mitocondrial cal esperar que n’hi hagi entre quaranta i mil que contindran fragments de DNA nuclear. És a dir, encara que això no es va mirar mai, és més que probable que en el primer estudi de DNA antic ja tingués lloc una recuperació de tipus paleogenòmic. Però amb aquesta tècnica el DNA antic no hauria pogut desenvolupar-se, en part per la impossibilitat de replicar els resultats, ja que que el clonatge no deixa de ser un mostreig genòmic a l’atzar. Només assolint elevades cobertures genòmiques —tècnicament i econòmicament inviables en aquell temps— podrí-
em esperar trobar diverses seqüències que cobrissin la mateixa regió. El desenvolupament de la reacció en cadena de la polimerasa (PCR), aplicada per primer cop el 1988 novament en la recuperació dels dos fragments ja estudiats de mtDNA del quagga, va permetre descobrir dos errors en les seqüències recuperades per clonatge, atribuïbles amb tota probabilitat a danys químics ocorreguts post mortem en el DNA original (Pääbo i Wilson, 1988). Però secundàriament, també va permetre l’aparició a gran escala d’aquest camp científic, que al cap d’uns anys, el 1997, va assolir una de les seves fites principals amb la primera recuperació de mtDNA d’una espècie humana extingida, els neandertals (Krings et al., 1997). DEL DNA MITOCONDRIAL ALS GENS NUCLEARS Cal remarcar que l’any 1999 un estudi va fer servir la PCR per recuperar alguns modestos fragments de DNA nuclear d’alguns mamífers plistocènics extingits: el mamut, el peresós gegant i l’ós de les cavernes (Greenwood et al., 1999). Tot i que les seqüències obtingudes no eren informatives des del punt de vista funcional o fenotípic, el principal interès de l’estudi va ser la demostració pràctica que no hi havia res, més enllà de la quantitat de DNA (es calcula que la proporció és d’u a mil), que impedís tècnicament accedir al genoma nuclear. Tot i que en la majoria de les mostres antigues només és possible recuperar fragments de mtDNA, en casos de conservació excepcionals, com la megafauna conservada en zones fredes, l’anàlisi específica de gens nuclears pot ser possible. En vegetals, un estudi fet l’any 2003 amb mostres de blat de moro d’alguns milers d’anys d’antiguitat, va permetre traçar un arrossegament selectiu en
Paleogenòmica 207
un determinat gen associat al procés de domesticació (Jaenicke-Després et al., 2003). De fet, el primer gen nuclear sencer no es va recuperar fins a l’any 2006, a partir de mostres de mamut siberianes; es tracta d’un gen d’un sol exó de menys de mil nucleòtids, l’MC1R (receptor 1 de la melanocortina), que, a més a més, té un clar efecte fenotípic en el color del cabell o del pelatge. En el cas dels mamuts, va ser possible recuperar-lo per PCR mitjançant la superposició d’una vintena de fragments en dos laboratoris diferents; a més, es va portar a terme un estudi funcional per saber l’efecte fenotípic d’unes variants no descrites en el mateix gen en els elefants (Römpler et al., 2006). Posteriorment, l’any 2007, es va fer el mateix amb un fragment del gen MC1R que presentava una variant específica en dues mostres de neandertals, la qual cosa va permetre confirmar una caiguda de funció de la proteïna resultant d’una intensitat similar a les variants que en humans moderns produeixen el fenotip pèl-roig (Lalueza-Fox et al., 2007). Aquest tipus d’aproximació funcional marca sens dubte el futur dels estudis paleogenòmics, després de l’obtenció d’esborranys genòmics. LA MITOGENÒMICA La PCR permet recuperar de manera específica fragments de DNA, i a partir d’una única o de poques còpies inicials poden generar-ne bilions de còpies, la qual cosa permet posteriorment obtenir-ne la seqüència. Les principals dificultats consisteixen a dissenyar encebadors que puguin unir-se eficientment al DNA endogen que es pretén recuperar (per la qual cosa es necessita disposar d’informació genètica d’espècies vives emparentades) i el fet que l’elevada fragmentació del DNA original implica treballar amb fragments molt curts, general-
ment entre cent i dos-cents nucleòtids de llargada. A priori, la quantitat d’encebadors necessaris i la dificultat de superposar nombrosos fragments són les úniques limitacions que impedeixen la recuperació de genomes mitocondrials sencers, que tenen una llargada d’uns 16.500 nucleòtids. Això és va portar a terme per primer cop el 2001, amb la recuperació dels genomes mitocondrials sencers de dues espècies de moes, unes aus gegants de Nova Zelanda, emparentades amb els actuals kiwis, estruços, emús, casuaris i nyandús, i que es van extingir fa uns quatre-cents anys (Cooper et al., 2001). L’aparició de la mitogenòmica va ser en part possible pel fet que la bona conservació del DNA va permetre recuperacions amb PCR de més de quatre-cents nucleòtids de llargada, però així i tot va requerir la superposició de gairebé vuitanta fragments diferents i de més d’un any de feina de laboratori. Una de les limitacions d’aquesta aproximació és la gran quantitat d’extracte requerit. La consecució del genoma mitocondrial dels moes va necessitar el processament d’uns quants grams d’os, un fet que hauria estat impossible si s’hagués tractat d’una resta única o molt petita. Es va trigar cinc anys a aconseguir un nou genoma mitocondrial complet, i aquest cop van ser tres estudis diferents, tots publicats l’any 2006, que van completar el genoma mitocondrial de tres espècimens de mamut. Potser el més remarcable és que tots tres estudis van emprar aproximacions metodològiques diferents. En un es va fer servir l’aproximació «clàssica» de l’estudi dels moes, és a dir, el fet d’anar superposant amb paciència dotzenes de fragments recuperats amb la PCR (Rogaev et al., 2006). En l’altre estudi, es van dissenyar dues PCR de tipus multiplex fetes amb dues passes (Krause et al., 2006). En el primer pas de la PCR, es barregen una gran quantitat d’encebadors (dissenyats per amplificar la
208 C. Lalueza-Fox
meitat de tot el genoma mitocondrial, en fragments que no se superposin) a molt baixa concentració; el producte d’aquesta PCR es dilueix i cada fragment és amplificat de manera individual en una segona PCR generada a partir de la primera. Després, es fa una segona PCR multiplex amb els encebadors dissenyats per omplir els forats que hi ha entre la primera tanda d’encebadors. Cal fer notar que aquesta estratègia permet estalviar enormement el volum d’extracte. Si en l’aproximació clàssica es necessitaven vuitanta reaccions diferents de PCR, pel que fa al volum d’extracte emprat, l’aproximació de tipus multiplex equival només a dues reaccions de PCR. Finalment, el darrer estudi obtenia el genoma mitocondrial d’una manera completament nova i no basada en la PCR: es tractava d’una nova aproximació metagenòmica (i per tant, inespecífica) de tipus shotgun (Poinar et al., 2006). SHOTGUN METAGENÒMIC S’entén per una aproximació metagenòmica la seqüenciació una mostra en la qual no ha estat possible aïllar els organismes que la componen, per la qual cosa cada seqüència s’identifica posteriorment mitjançant bases de dades genètiques. Per exemple, estudis fets a partir d’aigua de mar són aproximacions metagenòmiques, i produeixen seqüències de bacteris, virus i microorganismes diversos barrejades. Les mostres òssies de fauna extingida contenen no solament el DNA d’aquell organisme quan estava viu, sinó també el DNA de bacteris del sòl, de fongs, etc., que viuen en el sediment o han colonitzat l’os. Hi ha diverses metodologies metagenòmiques; l’enfocament emprat en l’estudi original del quagga, l’any 1984, podria considerar-se metagenòmic. De fet, l’any 2005, un grup va portar la tècnica de clonatge d’un extracte de DNA antic
en bacteris fins a l’extrem de produir vint-iset mil nucleòtids del genoma de dues mostres d’ós de les cavernes datades en fa uns quaranta mil anys. Bàsicament van processar grans mostres de quaranta grams d’os i ho van concentrar en un petit volum, van modificar químicament els extrems de tot el DNA contingut en l’extracte final, es van dedicar a clonar-lo en bacteris i després es van seqüenciar milers de colònies (Noonan et al., 2005). Aquesta tècnica és terriblement ineficaç; per obtenir 389 clons de la primera mostra amb DNA d’ós de les cavernes, van haver de seqüenciar prop de deu mil clons. És a dir, l’eficiència estava prop de l’1 % (tot i que era una mica més alta per a la segona mostra, que arribava al 6 %). A més a més, l’anàlisi de milers de colònies és un procés difícil d’automatitzar, i tot plegat es fa difícil imaginar que amb aquesta tècnica es pugui recuperar mai un genoma sencer. La tècnica del shotgun metagenòmic del tercer genoma mitocondrial de mamut havia estat desenvolupada feia pocs mesos i s’havia aplicat primer a la seqüenciació de genomes bacterians: la piroseqüenciació 454 de la companyia Life Sciences (Margulies et al., 2005). Per començar el procés, es necessiten fragments curts de DNA de cadena doble i extrems roms. Com que el DNA antic ja està degradat, aquest primer pas de fragmentació no cal dur-lo a terme. Primer, se reparen els extrems, i s’estén l’extrem 3´ (quan sobresurt el 5´) o es retalla quan és el 3´ el que sobresurt. Després s’afegeixen dos adaptadors (que són seqüències curtes específiques de cada projecte) a cada fragment de DNA, als extrems 3´ i 5´; un dels adaptadors està biotinilat i això farà que s’uneixi a unes microesferes de polímer. Després es trenquen les dobles cadenes amb NaOH (darrerament s’ha vist que és més eficient fer-ho senzillament amb calor) i ens quedem amb una sola cadena de cada fragment inicial de DNA (les que es-
Paleogenòmica 209
tan unides al polímer s’eliminen). A continuació, aquestes cadenes de DNA són amplificades en una PCR emulsionada, que consisteix en milions d’esferes de polímer microscòpiques que tenen la seva superfície recoberta per una seqüència complementària a un dels adaptadors. La PCR té lloc en un únic tub, on els reactius estan en solució aquosa i on s’afegeix oli, que queda emulsionat i envoltant cada microesfera, que té una sola cadena inicial de DNA. Al final de la reacció, s’obtenen centenars de milers de microesferes que estan literalment recobertes de milers de còpies de cadena única de cada fragment de DNA original. A continuació, tot això se centrifuga en una microplaca que té més d’un milió de pous que, pel seu diàmetre, únicament podran contenir una microesfera en el seu interior. Finalment, s’obté la seqüència del DNA de cada pou, partint des de l’adaptador extern, mitjançant una seqüenciació per síntesi (sequencing by synthesis, SBS) basada en una pirofosfatasa que, en presència d’una luciferasa, emet llum cada cop que un determinat nucleòtid s’afegeix a la cadena. Cada nucleòtid s’allibera de manera seqüencial (T, A, C, G, i de nou T, A, C, G, etc.); si un nucleòtid s’incorpora a la seqüència, la màquina detecta llum en aquell pou concret. D’aquesta manera és possible fer al voltant de 250.000 seqüències en una sola reacció (cada una pot arribar a uns cent nucleòtids, la qual cosa vol dir que es generen uns 20-30 milions de nucleòtids en poques hores). La nova generació de màquines de piroseqüenciació ha augmentat aquesta productivitat fins a uns cent milions, tant perquè han aconseguit allargar les seqüències fins a uns dos-cents nucleòtids (això és una mica irrellevant en DNA antic, ja que sol estar degradat a longituds inferiors), com perquè han augmentat el nombre de micropous per reacció. Una de les principals limitacions de la tècnica es dóna
quan una seqüència presenta una repetició del mateix nucleòtid; en principi el feix de llum resultant ha de ser proporcionalment intens al nombre de nucleòtids incorporats, però en la pràctica es poden produir errors a partir de cinc nucleòtids idèntics. Tornant al genoma mitocondrial del mamut, els investigadors van produir al voltant de setze milions de nucleòtids del genoma del mamut, la qual cosa constitueix una eficiència increïble del voltant del 50 % (Poinar et al., 2006). La resta de seqüències obtingudes eren fongs, bacteris o simplement desconegudes (probablement, són bacteris no descrits perquè no poden créixer en plaques de cultiu). Com que aquesta mostra contenia al voltant de deu milions de còpies de DNA mitocondrial per cada gram d’os, indirectament, els investigadors van poder obtenir tot el genoma mitocondrial amb una gran cobertura genòmica. Amb unes quantes reaccions més, s’ha aconseguit completar el genoma nuclear sencer dels mamuts (encara sense publicar). Val a dir que es tracta de mostres antigues que tenen un caràcter excepcional, ja que han estat extretes de permafrost siberià (sol permanentment congelat per sota de la superfície), que conserva molt bé el DNA, i es van mantenir congelades fins a arribar al laboratori, la qual cosa va limitar enormement la colonització de l’os per part de microorganismes. Estudis posteriors realitzats amb la mateixa tècnica, però a partir de pèls de mamut conservats en algunes carcasses, han mostrat també eficiències força altes (sembla que l’estructura empaquetada i queratinitzada, altament hidròfoba, del cabell, impedeix la proliferació de microorganismes) i la possibilitat d’obtenir genomes mitocondrials amb cobertures genòmiques de quaranta amb una sola reacció de piroseqüenciació 454.
210 C. Lalueza-Fox
EL PROJECTE GENOMA NEANDERTAL Amb les tècniques d’ultraseqüenciació com la piroseqüenciació 454 és possible, per primer cop des que existeixen els estudis paleogenètics, afrontar projectes de recuperació de genomes sencers d’espècies extingides. El més ambiciós d’aquests projectes, i el més complicat tècnicament, és el Projecte Genoma Neandertal, endegat l’any 2006 pel director del Departament de Genètica Evolutiva de l’Institut Max Planck de Leipzig, Svante Pääbo, amb un consorci amb la companyia 454 Life Sciences. El projecte ha finalitzat oficialment el 12 de febrer de 2009, amb l’obtenció d’un esborrany genòmic força complet (les regions repetitives no es podran recuperar mai) d’un neandertal, una espècie humana que va viure a Europa fa entre 400.000 i uns 28.000 anys, quan es van extingir els darrers, després de l’entrada a Europa dels nostres avantpassats provinents d’Àfrica. Per portar a terme aquest projecte hi ha algunes dificultats afegides. Primer, quan es treballa amb mostres de l’Europa temperada, com les que es fan servir en el Projecte Genoma Neandertal, les eficiències obtingudes no s’acosten mai a les del mamut. En l’estudi pilot, portat a terme amb la mostra Vi33.16 del jaciment croata de Vindija, només un 6 % de les seqüències obtingudes eren de tipus humà (Green et al., 2006; Noonan et al., 2006). Posteriorment, es va determinar que hi havia una contaminació amb DNA humà modern que estava al voltant d’un 30-50 % (segons algunes estimacions), la qual cosa baixaria el percentatge una mica més, fins al 3-4 %. Això és força coherent amb posteriors reaccions amb mostres de Vindija, que gairebé sempre han donat valors entre el 2 i el 4 %. Les mostres de El Sidrón (un jaciment asturià datat de fa uns 43.000 anys) només han arribat a eficiències del 0,1 %. L’extrema
ineficiència de les mostres de neandertals ha significat només que s’ha hagut d’augmentar la capacitat de seqüenciació. A partir del mes de juny de l’any 2008, la companyia Life Sciences ha posat totes les seves màquines de piroseqüenciació 454 a disposició del projecte. Però el problema principal del Projecte Neandertal és un altre: la contaminació de les mostres amb DNA humà modern i la impossibilitat de distingir gran part d’aquestes seqüències contaminants de les endògenes. Totes les mostres antigues excavades, tocades i netejades, tenen un cert grau de contaminació del DNA dels investigadors (normalment arqueòlegs) que han realitzat aquestes tasques. Tant els ossos com les dents són permeables i permeten l’entrada de DNA a l’interior dels teixits, especialment en presència d’aigua. Per exemple, en un estudi preliminar de piroseqüenciació 454 portat a terme amb el càprid extingit de les illes Balears Myotragus balearicus, i recuperat sense guants pels excavadors, hi ha al voltant d’un 1 % de seqüències humanes contaminants, tantes com seqüències de bòvid i, per tant, endògenes. Tot això no constitueix òbviament un problema quan es treballa amb altres espècies com mamuts o óssos de les cavernes, ja que les seqüències humanes són prou diferents i poden ser distingides, però cal recordar que neandertals i humans moderns deuen ser idèntics en potser un 99,5 % del genoma. Una possibilitat que hem assajat al jaciment de El Sidrón és la de controlar a priori la contaminació, extraient les mostres amb vestits de laboratori estèrils, congelant-les immediatament i també genotipant les persones involucrades en l’excavació. En algunes mostres de neandertals ha estat possible demostrar, mitjançant l’amplificació amb PCR de fragments de DNA mitocondrial, que la contaminació humana és molt petita, entre un 10 i un 15 %. Les mostres de Vindija tenen un
Paleogenòmica 211
grau similar de contaminació per un fenomen d’atzar: quan es va excavar el jaciment, l’any 1980, alguns fragments ossis eren tan petits que van ser confosos amb els d’ós de les cavernes i van ser desats en un calaix a part, on ningú no els va estudiar. És remarcable també que els individus dels dos jaciments (que ara mateix són els jaciments amb les restes que conserven més DNA d’Europa) van ser víctimes del canibalisme. Podria ser que això, secundàriament, hagués evitat una major degradació del DNA per una menor intervenció de bacteris associats a la descomposició dels teixits tous. En tot cas, el genoma de neandertal serà una espècie de genoma probabilístic, en què no serà possible descartar una contaminació humana residual en alguns punts. Per això en el futur s’hauran de portar a terme projectes de diversitat genòmica neandertal, o fins i tot intentar l’anàlisi d’algunes restes d’hominins anteriors, com els Homo erectus que es trobin dins el rang temporal d’unes desenes de milers d’anys. PERSPECTIVES I PROBLEMES Les noves tècniques d’ultraseqüenciació, no solament la versió millorada de la piroseqüenciació, sinó també les noves plataformes de Solexa-Illumina i d’Applied Biosystems (Solid), permeten l’assoliment de genomes sencers d’espècies extingides, fins i tot en el cas d’ambients relativament temperats com Europa i amb eficiències de recuperació tan baixes com un 10 % o menys. Les limitacions de conservació del DNA antic fan que això només sigui possible dins un rang temporal de poques desenes de milers d’anys, suficient, però, per posar a l’abast nostre un gran nombre d’espècies extingides, especialment megafauna, a Euràsia, Amèrica i Austràlia (i també, és clar, per estudiar els avantpassats de les espècies
domesticades i veure quins gens han estat seleccionats artificialment pels humans des del neolític). Tot això haurà d’anar acompanyat d’un coneixement genòmic profund de les espècies actuals que hi estan emparentades; per exemple, l’obtenció del genoma del mamut ha posat de manifest que, per conèixer quins gens poden estar implicats en trets propis dels mamuts com el pelatge llarg (els elefants actuals gairebé no tenen pèl), s’ha de disposar també del genoma de l’elefant africà i asiàtic. Com en altres vegades en paleogenètica, sorprèn que sigui possible acabar primer un genoma extingit que no els dels éssers que encara estan vius (això també va passar quan es va aconseguir el genoma mitocondrial sencer dels moes, ja que a continuació es va haver de seqüenciar el genoma del casuari, del kiwi, del nyandú i de l’estruç). Un problema dels estudis de tipus shotgun és que és impossible distingir quines substitucions nucleotídiques són degudes a canvis evolutius en el llinatge que s’està estudiant i quines a danys químics post mortem del DNA original. La immensa majoria d’aquests danys són canvis deguts a desaminacions de citosines a uracils, que queden en la seqüència final com a falsos canvis de citosines a timines (o de guanines a adenines si la desaminació de la citosina s’ha donat en la cadena oposada). Per exemple, els arbres filogenètics portats a terme amb les seqüències shotgun de neandertals i de mamuts sempre mostren branques anormalment llargues per a l’espècie extingida comparada amb les espècies actuals emparentades; quan s’han suprimit els canvis CT i G-A, aquest artefacte desapareix de l’arbre. Per aconseguir esbrinar quins canvis són reals i quins són danys post mortem, s’haurà de recuperar específicament cada un (p. ex., amb centenars de PCR multiplexades) i repetir-ho diverses vegades per als casos que puguin ser heterozigots per a de-
212 C. Lalueza-Fox
terminades variants. Això pot ser una feina gegantina perquè, per exemple, entre neandertals i humans moderns s’esperen trobar entre un i quatre milions de diferències (és clar que només aquelles que es trobessin en exons tindrien interès evolutiu). Alternativament, no caldria fer-ho si s’aconseguissin cobertures genòmiques entre vint i cent (o almenys més de dotze), quelcom que sembla tècnicament i econòmicament inviable, excepte en el cas del genoma mitocondrial. Finalment, aconseguir un esborrany genòmic és un primer pas, però per entendre què volen dir els canvis trobats en els diferents gens a escala evolutiva, s’hauran de fer desenes d’estudis funcionals, semblants als que ja s’han fet per al gen de la pigmentació en mamuts i neandertals. La genòmica funcional, ja sigui en estudis in vitro o a partir de models animals (en el cas del genoma de neandertal, és evident que s’hauran de «neandertalitzar» ratolins) serà el següent pas en els futurs estudis paleogenòmics i marcarà un nou horitzó en el coneixement dels processos evolutius passats. BIBLIOGRAFIA Cooper, A.; Lalueza-Fox, C.; Anderson, S.; Rambaut, A.; Austin, J.; Ward, R. (2001). «Complete mitochondrial genome sequences of two extinct moas clarify ratite evolution». Nature, 409: 704-707. Green, R. E.; Krause, J.; Ptak, S. E.; Briggs, A. W.; Ronan, M. T.; Simons, J. F.; Du, L.; Egholm, M.; Rothberg, J. M.; Paunovic, M.; Paabo, S. (2006). «Analysis of one million base pairs of Neanderthal DNA». Nature, 444: 330-336. Greenwood, A. D.; Capelli, C.; Possnert, G.; Pääbo, S. (1999). «Nuclear DNA sequences from late Pleistocene megafauna». Mol. Biol. Evol., 16: 1466-1473. Higuchi, R.; Bowman, B.; Freiberger, M.; Ryder, O. A.; Wilson, A. C. (1984). «DNA sequences from the quagga, an extinct member of the horse family». Nature, 312: 282-284. Horeiter, M. (2008). «Paleogenomics». C. R. Palevol., 7: 113-124. Jaenicke-Després, V.; Buckler, E. S.; Smith, B. D.; Gil-
bert, M. T.; Cooper, A.; Doebley, J.; Pääbo, S. (2003). «Early allelic selection in maize as revealed by ancient DNA». Science, 302: 1206-1208. Krause, J.; Dear, P. H.; Pollack, J. L.; Slatkin, M.; Spriggs, H.; Barnes, I.; Lister, A. M.; Ebersberger, I.; Pääbo, S.; Hofreiter, M. (2006). «Multiplex amplification of the mammoth mitochondrial genome and the evolution of Elephantidae». Nature, 439: 724-727. Krings, M.; Stone, A.; Schmitz, R. W.; Krainitzki, H.; Stoneking, M.; Pääbo, S. (1997). «Neandertal DNA sequences and the origin of modern humans». Cell, 90: 19-30. Lalueza-Fox, C.; Gigli, E.; Rasilla, M. de la; Fortea, J.; Rosas, A.; Bertranpetit, J.; Krause, J. (2008). «Genetic characterization of the ABO blood group in Neandertals». BMC Evolutionary Biology, 8: 342 Lalueza-Fox, C.; Römpler, H.; Caramelli, D. [et al.] (2007). «A melanocortin 1 receptor allele suggests variying pigmentation among Neanderthals». Science, 318: 1453-1455. Margulies, M.; Egholm, M.; Altman, W. E. [et al.] (2005). «Genome sequencing in microfabricated high-density picolitre reactors». Nature, 437: 376380. Noonan, J. P.; Coop, G.; Kudaravalli, S.; Smith, D.; Krause, J.; Alessi, J.; Chen, F.; Platt, D.; Pääbo, S.; Pritchard, J. K.; Rubin, E. M. (2006). «Sequencing and analysis of neanderthal genomic DNA». Science, 314: 1113-1118. Noonan, J. P.; Hofreiter, M.; Smith, D.; Priest, J. R.; Rohland, N.; Rabeder, G.; Krause, J.; Detter, J. C.; Pääbo, S.; Rubin, E. M. (2005). «Genomic sequencing of Pleistocene cave bears». Science, 309: 597599. Pääbo, S.; Wilson, A. C. (1988). «Polymerase chain reaction reveals cloning artefacts». Nature, 334: 387388. Poinar, H. N.; Schwarz, C.; Qi, J.; Shapiro, B.; Macphee, R. D.; Buigues, B.; Tikhonov, A.; Huson, D. H.; Tomsho, L. P.; Auch, A.; Rampp, M.; Miller, W.; Schuster, S. C. (2006). «Metagenomics to paleogenomics: large-scale sequencing of mammoth DNA». Science, 311: 392-394. Rogaev, E. I.; Moliaka, Y. K.; Malyarchuk, B. A.; Kondrashov, F. A.; Derenko, M. V.; Chumakov, I.; Gri gorenko, A. P. (2006). «Complete mitochondrial genome and phylogeny of Pleistocene mammoth Mammuthus primigenius». PLoS Biol., 4: e73. Römpler, H.; Rohland, N.; Lalueza-Fox, C.; Willerslev, E.; Kuznetsova, T.; Rabeder, G.; Bertranpetit, J.; Schöneberg, T.; Hofreiter, M. (2006). «Nuclear gene indicates coat-color polymorphism in mammoths». Science, 313: 62.
DOI: 10.2436/20.1501.02.87
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 213-229
THE EVOLUTION OF COOPERATION Mauro Santos 1 i Eörs Szathmáry 2,3,4 Departament de Genètica i de Microbiologia, Universitat Autònoma de Barcelona. Collegium Budapest, Institute for Advanced Study, Hungary. 3 Institute of Biology, Eötvös University, Hungary. 4 Parmenides Center for the Study of Thinking, Germany. 1 2
Adreça per a la correspondència: Mauro Santos. Departament de Genètica i de Microbiologia, Facultat de Biociències, Universitat Autònoma de Barcelona. Campus de Bellaterra. 08193 Bellaterra. Adreça electrònica: mauro.santos@uab.es. RESUM L’aproximació a l’evolució centrada en el gen o del gen egoista aparentment entra en conflicte amb l’observació que la cooperació és freqüent en les interaccions socials humanes i també es pot reconèixer en animals no humans. Sense cooperació no haurien pogut sorgir les unitats evolutives de nivells superiors. Aquí resumim el pensament evolutiu actual sobre com poden evolucionar la cooperació i l’altruisme. A més, discutim els resultats dels experiments de la teoria de jocs per estudiar les interaccions socials que indiquen que els humans no s’ajusten a les prediccions de l’equilibri de Nash «racional». Aquests resultats són de gran interès per als biòlegs i científics socials, especialment si es desitja tenir un marc de referència comú per entendre com sorgeix la sociabilitat. Paraules clau: altruisme, cooperació, teoria de jocs, nivells de selecció, transicions evolutives principals. SUMMARY The gene-centred or selfish-gene approach to evolution apparently conflicts with the observation that cooperation is commonplace in human social interactions, and can also be recognized in non-human animals. Without cooperation, higher-level units of evolution could not have emerged. Here we summarize current evolutionary thinking on how cooperation and altruism can evolve. We also discuss the results reached by game theoretic experiments for studying social interactions, which indicate that humans do not conform to Nash equilibrium (“rational”) predictions. These results are of wide interest to biologists and social scientists, particularly if we want to have a common framework to understand how sociality arises.
214 M. Santos i E. Szathmáry
Key words: altruism, cooperation, game theory, levels of selection, major evolutionary transitions. INTRODUCTION The catchy phrase “survival of the fittest” is a metaphor widely used in popular literature to stress the idea that fierce competition prevails in the natural world, and has been taken (erroneously) as a short description of the Darwinian theory of evolution by natural selection. Although Darwin did think of natural selection as a process that allows the evolution of traits that directly and solely benefit the individual possessing them (e.g., sharp teeth, high speed, visual acuity, warning coloration, etc.), he also occasionally considered that characters may be selected for because they are advantageous to the “community” or the family. Thus, in the Origin of Species Darwin evokes the idea that certain instincts that lead to the death of the individual (e.g., the instinct that drives the bee to sting and thus to die) could have evolved by natural selection because they were “useful to the community” (Darwin, 1859). In the Descent of Man a similar idea is used to explain the development of certain moral virtues, such as courage, obedience and faithfulness (Darwin, 1871, p. 166): “It must not be forgotten that although a high standard of morality gives but a slight or no advantage to each individual man and his children over the other men of the same tribe, yet that an advancement in the standard of morality and an increase in the number of well-endowed men will certainly give an immense advantage to one tribe over another. There can be no doubt that a tribe including many members who, from possessing in a high degree the spirit of patriotism, fi-
delity, obedience, courage, and sympathy, were always ready to give aid to each other and to sacrifice themselves for the common good, would be victorious over most tribes; and this would be natural selection”. Therefore, the typical notion laypeople have about Darwin’s theory, in the sense that it provides a justification for any behavior that promotes selfishness and undermines moral standards, is simply wrong. Having said this, however, it must be acknowledged that Darwin’s concept of selection was mainly individualistic and he never discussed how important the selection among groups (“tribes”) could have been in shaping the history of life. The social insect case can be mentioned here because the advantage to the family is mentioned. From the preceding paragraphs it is clear that the evolution of cooperation contrasts sharply with the concept of selection for traits that solely benefit the individual possessing them. Cooperation here is understood as a behavior that involves an action performed by one individual that benefits one or more other members, embedded in a situation that poses a dilemma for the individual engaged in a social interaction. Facing a social dilemma, when should a person cooperate? When should a person be selfish? Should we punish Russia for its hostile act against Georgia? (Admittedly, this is a bit of a problem since now we know that the Russian aggression was provoked by the Georgians and the initial reaction of many newspapers was to overlook that fact.)
The evolution of cooperation 215
PLAYING THE GAME An intuitive understanding in these types of situations can be obtained by using a particular game called the Prisoner’s Dilemma. In its classical form, the version of this game goes as follows (e.g. Rice, 2004). Two people are suspected of having committed a joint crime. The suspects are confined to different rooms and cannot talk to each other. The police do not have sufficient evidence to convince a jury. The state attorney offers each of the suspects a deal: if one testifies for the prosecution and confesses (“defects”) against the other and the other remains silent, the betrayer goes free and the silent accomplice receives the full sentence of ten years. If both confess, they will each receive seven years. If neither of them confesses, then both will go free after one year in prison for a minor charge because nothing can be proved. This dilemma is represented by the following matrix, where the rows refer to the action (i.e., remain silent or confess) chosen by one prisoner (say P1) and the columns to the action taken by the other prisoner (say P2):
Prisoner P1
Remain silent Confess
Prisoner P2 Remain siConfess lent P1 = –1, P1 = –10, P2 = –1 P2 = 0 P1 = 0, P1 = –7, P2 = –10 P2 = –7
Negative numbers obviously signify that a convict loses years of their life in jail according to each other’s decision. How should the prisoners act? A formal approach to the problem is to use game theory, which has become the basic framework to study situations that involve strategic interactions. Assume for instance that you are prisoner P1. The game can be analyzed by
considering your best strategy against the decision taken by prisoner P2. If he remains silent, it is best for you to confess and go free (P1 = 0, P2 = –10). If he confesses, you also better confess to avoid a longer sentence (P1 = –7, P2 = –7). Therefore, no matter what he does, the best strategy for you is to confess. A similar reasoning applies to prisoner P2, thus the best strategy is always to confess although it is clear that by doing so, both prisoners will suffer a sentence that is six years longer than that obtained if both remain silent. The strategy confess-confess defines a “Nash equilibrium”: namely, a strategy profile such that each prisoner’s play is the best response to that of the other. Cooperating (remain silent) is strictly dominated by defecting (confess). The fact that the rational pursuit of individual interest apparently drives both partners to an inferior profile helps account for the enduring interest in the Prisoner’s Dilemma game. The conclusion appears to violate the gut feeling intuition that interactions among individuals usually lead to mutually beneficial outcomes; in other words, the two players in the Prisoner’s Dilemma game should apparently cooperate to minimize their mutual loss (remain silent and both of them will spend only one year in prison), but this would not be a logical decision. What is the significance of all this to biology anyway? It turns out that this problem is as old as the origin of life itself [“cooperators since life began” is the title of an insightful review by Queller (1997) in The Quarterly Review of Biology]. The evolution of biological complexity often requires the coordinate action (“cooperation”) of different parts that function to ensure the survival and reproduction of the whole. Thus, earlier replicating molecules had to cooperate to form the first cells. During the emergence of multicellular organisms, single cells had to cooperate and
216 M. Santos i E. Szathmáry
today they exist only as parts of a larger individual. Eusociality (found primarily in social insects but also in some other organisms) is a level of social organization where members cooperate in brood care, and are separated into reproductive and non-reproductive castes. On a larger scale, humans cooperate in raising states and countries that they themselves engage in cooperative commercial and communication activities. Yet, our understanding of the origin and maintenance of cooperation at any level is fraught with difficulties. Genes in an organism sometimes “disagree” and, for example, can have a beneficial effect on females but a detrimental one on males. Cancers are selfish cell lineages, namely, clones of cells in a multicellular organism that have evolved a higher rate of division compared to other non-cancerous lineages. And the Achilles’ heel in human cooperation was clearly appreciated by Thomas Hobbes when he wrote in the Leviathan (1651, chap. xvii): “For the laws of nature, as justice, equity, modesty, mercy, and, in sum, doing to others as we would be done to, of themselves, without the terror of some power to cause them to be observed, are contrary to our natural passions, that carry us to partiality, pride, revenge, and the like. And covenants, without the sword, are but words and of no strength to secure a man at all. Therefore, notwithstanding the laws of nature (which every one hath then kept, when he has the will to keep them, when he can do it safely), if there be no power erected, or not great enough for our security, every man will and may lawfully rely on his own strength and art for caution against all other men”. In other words, Hobbes argued that individuals would find it mutually beneficial
to agree in order to restrain their “natural” tendencies toward deception. However, after the social contract any party would experience the incentive to violate the agreement and eventually would do so to enjoy an immediate benefit. The only satisfactory remedy to this situation of affairs, according to Hobbes, is the introduction of a coercive state with a monopoly on the use of force to which individuals would submit to voluntarily. What humans normally do when faced with the Prisoner’s Dilemma game? This issue can be explored by using experimental methods that allow the study of behavior in situations where different considerations may be controlled for. Notwithstanding the predictions suggested by game theory analysis, the results of various experiments that have been carried out so far show unambiguously that a majority of subjects (about 60%) achieved mutual cooperation. This is jointly better for the players than mutual defection, although defection is always individually superior. When Nash first heard about these results, he wrote the following note (Field, 2001, p. 5): “I would have thought them (the players) more rational”. This comment raises the important issue about what it means for humans to be rational. EXPLAINING COOPERATION Given the problem of cooperation, how can cooperative behaviors arise and be maintained? Conventional (individualistic) Darwinian theory seems unable to really explain why one individual should pay a cost in terms of fitness in order to benefit another individual. The reason is simple: an altruistic individual will leave less offspring than its selfish counterparts, so any inherited tendency to be altruistic will de-
The evolution of cooperation 217
crease in frequency and eventually disappear from the population. Apparently, the only way out to explain the evolution of cooperation is to restore the idea of selection between groups, as Darwin put forward. But in the 1960s a few scientists challenged most biologists’ positive attitude towards the importance of group selection, and stressed that natural selection was intrinsically selfish and that cooperative acts could only evolve under restrictive conditions (Hamilton, 1964; Williams, 1966). Before explaining the solution offered by Hamilton (1964) for the evolution of altruism, it pays to summarize here the dissatisfaction felt by some theoreticians with the idea of group selection (for a comprehensive account, see Wilson and Wilson, 2007). The following passage by Williams (1966, pp. 92-93) gives a flavor of the intellectual holes in the theory of group selection at that time: “This book is a rejoinder to those who have questioned the adequacy of the traditional (individualistic) model of natural selection to explain evolutionary adaptation… Many biologists have implied, and a moderate number have explicitly maintained, that groups of interacting individuals may be adaptively organized in such a way that individual interests are compromised by a functional subordination to group interests. It is universally conceded by those who have seriously concerned themselves with this problem […] that such grouprelated adaptations must be attributed to the natural selection of alternative groups of individuals and that the natural selection of alternative alleles within populations will be opposed to this development. I am in entire agreement with the reasoning behind this conclusion. Only by a theory of between-group selection
could we achieve a scientific explanation of group-related adaptations. However, I would question the premises on which the reasoning is based. Chapters 5 to 8 will be primarily a defense of the thesis that group-related adaptations do not, in fact, exist. A group in this discussion should be understood to mean something other than a family and to be composed of individuals that need not be closely related”. Here Williams punches in the so-called traditional view of group selection. Together with various theoretical analysis [in particular, Maynard Smith’s (1964) “haystack model” and latter, more refined models (e.g. Eshel, 1972)], it was clear that traits that are disadvantageous to the individual, but that lower the probability of group extinction (recall Darwin’s paragraph in the Introduction), can persevere only if the population is structured into extremely isolated groups. This result suggests that the likelihood of successful group selection is small. Note that at the end of the preceding quotation Williams wrote, “A group […] should be understood […] to be composed of individuals that need not be closely related.” This point is important and has been hidden in some recent theoretical analyses of group selection (see below). In 1932 and again in 1955, J. B. S. Haldane, one of the founders on the modern genetic theory of evolution, pointed out that an individual’s genes could also be (indirectly) multiplied through the actions performed by such individual in favoring the differential survival and reproduction of collateral relatives (e.g., siblings, nieces, and cousins) to sufficient degree (Haldane, 1932, 1955). This initial insight was expanded by William D. (Bill) Hamilton (born August 1, 1936; died March 7, 2000), one of the most influential Darwinian thinkers of our time. Hamilton
218 M. Santos i E. Szathmáry
wondered: how natural selection can maintain (altruistic) traits that, even if advantageous for the population, apparently reduce the number of their carriers below their shares in the population? The answer he gave came from extending the classical population genetics theory to cover those situations where the altruistic behaviour is directed towards genetic relatives: an inherited behaviour is selected for in a population if and only if it results in an increase in the number of genes identical by descent (i.e., those gene copies that are shared between relatives according to Mendelian rules) to those of the individual that performs the behaviour. Thus, whenever the altruistic action is directed toward relatives the behavior can spread throughout the population by natural selection. The conditions under which the behavior increases are encapsulated in Hamilton’s (1964) rule [we are sympathetic with Hawking’s “fault” of including Einstein’s celebrated equation E = mc2 in his popular-science book A Brief History of Time (1988) and also include here the most famous inequality in evolutionary biology, which happens to have the same number of parameters]: rb > c where r is the coefficient of relatedness (roughly speaking, the probability of sharing gene copies) between actor and recipient, b is the fitness benefit (offspring gain) provided to the recipient, and c is the reproductive cost to the actor for providing benefits. In colloquial language, the rule states that it pays to risk your life if by performing an action, you save the life of your two children. Any mother will surely agree with this, and the reasons for this are not only “psychological”. Haldane (1955) put it is this way: “I will risk death to save my child from a raging river if the odds are at
least two to one that I will succeed (because she shares roughly half my genes); but I will jump in the river to save my cousin only if the odds favoring success are seven in eight (because she has only one-eight of my genes). Trying to save my grandmother makes no sense at all because, being past child-bearing age, she can pass on none of my genes to the next generation.” Hamilton’s rule to explain the evolution of altruistic traits became one of the central dogmas of the modern theory of evolution, and his approach is known as “kin selection” or “inclusive fitness theory” (albeit technically speaking these labels are not strictly equivalent). Hamilton’s paper on “the genetical evolution of social behaviour” (1964) also became one of the most cited papers in all science (4,282 citations according to a recent search on Web of Science). Due to the combined influence of Hamilton’s, Maynard Smith’s and Williams’ work, all previous explanations of social behaviors that have evolved because of their importance for the well-being of the group fell into widespread disrepute and were eradicated from the mainstream of evolutionary thinking. Group-selection became a taboo expression that has, however, not been expunged entirely from evolutionary theory, and remains vindicated in some quarters although with several meanings. For instance, Sober and Wilson have been passionate supporters of group selection and have attacked in their book Unto Others (1998) the widespread consensus that group selection is a negligible evolutionary process. However, the traditional view of group selection advocated in particular by Williams (1966) and Maynard Smith (1964), is not what Sober and Wilson had in mind. A more recent view of group selection is that populations are frequently subdivided into small temporary groups, termed “struc-
The evolution of cooperation 219
tured-deme” or “trait-group” models (Wilson 1975, 1979), and that the subdivision can result in group-mediated evolutionary change (Hamilton, 1975; Wilson, 1975). Figure 1 illustrates the “mating pool” mode of reproduction, where offspring genotypes at each generation are sampled from a common population and subdivided into temporary groups in which individuals representing a finite sample from the pooled distribution reproduce in proportion to their fitness. A single heritable trait (allele A) stimulates its bearer to provide a group benefit, and its eventual spread is conditional on the greater productivity of altruistic groups. But now things become (technically) complicated because different definitions of altruism have been used throughout the literature. Hamilton consistently defined altruism as a cooperative behavior that decreases the absolute fitness (i.e., involves an absolute cost in terms of offspring production) of the individual that performs it. However, various authors (inGroup 1
Group 2
Group m
……….
Mating pool
……….
Figure 1. The “mating pool” mode of reproduction. At each generation, selection acts on groups of individuals (open and closed circles represent different genotypes) that contribute offspring to a common pool which again forms new groups before selection.
cluding Sober and Wilson, 1998) refer to a given behavior as “altruistic” even if it decreases the relative fitness of the agent (i.e., the cost in terms of offspring production is relative to the local group and not to the population as a whole). This apparently harmless disparity in the definition of altruism has profound consequences on the eventual evolutionary fate of the behavior under consideration (also in the eventual role of group selection to explaining human cooperation; see Concluding Remarks). Sober and Wilson’s argue that a behavior counts as altruistic if, first, within any group individuals that perform the behavior are less fit than those that do not; and second, the greater the proportion of individuals that perform the behavior in a given group, the greater the group’s fitness (i.e., the greater the contribution of the group to the mating pool). These conditions do not imply that “altruism” reduces the donor’s absolute fitness; namely, they do not imply that the behavior is really altruistic. This is an important point, but the reasons for it are unfortunately somewhat too technical to be explained here and the interested reader can refer to Okasha (2006, pp. 192-197) for a lucid discussion. On the other hand, Hamilton’s definition implies that a behavior is really altruistic and can evolve in a structured-deme model if and only if there is positive assortment for the benefits of altruism to fall preferentially on other altruists (i.e., altruists settle with altruists; Hamilton, 1975). Positive assortment guarantees altruist’s mutual aid and Hamilton’s inclusive fitness rule is recovered. However, although assortative grouping may explain how altruism is sustained in the population it is not an explanation for its origin. It is important to avoid the “inverse genetic fallacy” (Field, 2001). Namely, that the inappropriate attribution of
220 M. Santos i E. Szathmáry
mechanisms may be sustaining cooperation to the explanation of its origin. The initial barrier to selection in Hamilton’s model arises because positive assortment is negligible when altruism is initially very rare. The barrier must be passed by a different mechanism (see Santos and Szathmáry, 2008). LEVELS OF SELECTION A particular illuminating formulation that can be used to understand the relative merits that individual and group selection mechanisms have on the evolution of cooperation is that of Price (1970, 1972). His method involves a simple algebraic expression that describes a population’s evolution from one generation to another. Actually, Hamilton’s (1975) paper of group selection was fostered by Price’s idea, and included a section entitled “Levels of Selection” where Hamilton made use of Price’s equation for the first time to formally study a hierarchical approach to the operation of natural selection (he assumed a mating pool mode of reproduction). This approach has become standard in evolutionary theory ever since and can be generalized to an indefinite number of hierarchical levels, an issue that underlines many disputes about group selection (the debate of group selection has been characterized by perennial disagreements over concepts and terminology). In the last years, there has been an ongoing dispute on the equivalence of kin selection and levels of selection approaches for modeling social evolution. However, both approaches are indeed equivalent and the confusion, as shown by Bijma and Wade (2008), is partly caused by the fact that levels of selection models tend to hide the relatedness component of response to selection, whereas kin selection models tend to
hide the multilevel selection component of response to selection. Thus, kin selection does not work without multiple groups of kin. A key empirical breakthrough in evolutionary biology was to recognize that individual (selfish) organisms that adapt to the environment by natural selection originated as cooperative collectives that experienced a series of “transitions in individuality” (Buss, 1987). In the biological progression from molecule to cell to body to species, the units at each level tend to be nested into ever more inclusive units: a testament of the importance of cooperation in the evolution of life on Earth. Using a traditional view of natural selection, it is hard to understand how this hierarchical organization—with potential conflicts between the different units (genes, chromosomes, organelles, cells, etc.; see Burt and Trivers, 2006)—has evolved. From the growing body of work on “major evolutionary transitions” it has become clear that a multi-level selection scenario is central to explaining those transitions. In their book The Major Transitions in Evolution, Maynard Smith and Szathmáry (1995, p. 3) wrote: “Our thesis is that the increase (in biological complexity) has depended on a small number of major transitions in the way in which genetic information is transmitted between generations. Some of these transitions were unique: for example, the origin of the eukaryotes from the prokaryotes […]. Other transitions, such as the origin of multicellularity, and of animal societies, have occurred several times independently”. And on page 8 they state: “The transitions must be explained in
The evolution of cooperation 221
terms of immediate selective advantage to individual replicators: we are committed to the gene-centered approach outline by Williams (1966), and made still more explicit by Dawkins (1976)”. Does this mean that Maynard Smith and Szathmáry excluded (old) group selection? Not really! For Maynard Smith and Szathmáry the gene-centered view is a heuristic perspective—“I find the gene-centered approach both mathema-tically simpler and causally more appropriate, but this may merely reflect the fact that I prefer microscopic to holistic models: Maxwell-Boltzmann to classical thermodynamics, and Dawkins to Price’s equation” (Maynard Smith, 2002, p. 523)—, not an empirical hypothesis concerning the path of evolution. It is also illuminating here to recall what Williams wrote himself in 1996 (p. xii) in the preface to his 1966 reprinted book: “A few years after 1966, I was being given credit for showing that the adaptation concept was not usually applicable at the population or higher levels, and that Wynne-Edwards’s thesis that group selection regularly leads to regulation of population density by individual restrains on reproduction was without merit. It also became fashionable to cite my work (sometimes, I suspect, by people who had not read it) as showing that effective selection above the individual level can be ruled out. My recollection, and my current interpretation of the text, especially of Chapter 4, indicates that this is a misreading. I concluded merely that group selection was not strong enough to produce what I termed biotic adaptation: any complex mechanism clearly designed to augment the success of a population or a more inclusive group. A biotic adaptation would be characterized by or-
ganisms’ playing roles that would subordinate their individual interests for some higher value, as in the often proposed benefit to the species”. The question therefore is: do we have biotic adaptations in the evolution of biological complexity that need to be explained by group selection? Amazingly enough, the very origin of life may have required group selection! Today every autonomous living system is cellular (prokaryotic or eukaryotic, uni- or multicellular) in nature, as advocated by the Schwann-Schleiden cell theory in the midnineteenth century. A working definition of “minimal life” system is a chemical supersystem comprising three systems: a metabolic network, template replication, and a boundary system (Gánti, 2003; Szathmáry et al., 2005). A model that satisfies these criteria is the “stochastic corrector model” (SCM; Szathmáry and Demeter, 1987; Zintzaras et al., 2002; Santos et al., 2003), which describes the dynamics of independent replicators (genes: chromosomes were a latter development in the origin of life) encapsulated in a reproductive vesicle or compartment (protocell). The behavior of the (super-) system depends on a two-level selection dynamics (figure 2). First, there is within-compartment (among-replicator) selection, where replicators compete among them within compartments to increase their relative shares (i.e., “the immediate selective advantage” required for Maynard Smith and Szathmáry to explain the major evolutionary transitions). Second, betweencompartment (among-protocell) selection on stochastically produced offspring variants after protocell fission can rescue the population from extinction (favoring cooperative molecules). Since protocells in this model are groups of independent replicating entities (genes), the SCM explicitly
222 M. Santos i E. Szathmáry
invokes group (among-protocell) selection. On biological grounds the ingredient of group selection was automatically guaranteed once compartments met the criteria for “minimal life”. The SCM was advocated by Maynard Smith and Szathmáry (1995) since it opens great possibilities for continued evolution. For instance, it was specifically used to model the evolutionary origin of chromosomes (Maynard Smith and Szathmáry, 1993), to study how the danger of information decay in primitive genetic
growth
division
Figure 2. A “minimal life” model as depicted by the SCM. Different templates (labeled by open and closed circles) contribute to the well being of the compartments (protocells) in that they catalyze steps of metabolism, for example. During protocell growth templates replicate at differential expected rates, but stochastically. Upon division there is chance assortment of templates into offspring compartments. Stochastic replication and reassortment generate variation among protocells, on which natural selection at the compartment level can act and oppose (correct) internal deterioration due to within-cell competition.
systems could have been overcome (Zintzaras et al., 2002), to investigate issues bearing on the origin of sex (Santos et al., 2003), and to test the potential effect of recombination to circumvent the crisis of information transmission in early evolution (Santos et al., 2004). The moral here is clear: Maynard Smith (1964) advanced the “haystack model” to show the unlikelihood of (old) group selection (although he did not dismiss it altogether), but later relied upon group selection to understand some major evolutionary transitions. In fact, in the preface to their book Maynard Smith and Szathmáry (1995) acknowledge that the (incomplete) similarity between the haystack and the SCM was one of the impetuses behind writing it. If the SCM can be taken seriously, we must conclude that group selection played a vital role in the origin of life. Obviously, this should not be taken to mean that (old) group selection is a widespread mechanism to explain cooperation. Perhaps the situation here is similar to that in the origin of eukaryotes: there is no doubt that mitochondria and chloroplasts are descended from endosymbiotic events that may have occurred very few times throughout the history of life, but the consequences of these very unlikely events have clearly been spectacular. EVOLUTIONARY GAME THEORY Kin selection was not the only alternative explanation of cooperation that emerged out of discontent with traditional group selection. Another idea, which could explain altruism among non-relatives, was the evolutionary game theory introduced by Maynard Smith and Price (1973) although closely related ideas were developed by Trivers (1971) and Axelrod and Hamilton (1981). Ev-
The evolution of cooperation 223
olutionary game theory means that the fitness of the individuals is not constant, but depends on the relative frequencies of various strategies in the population; in other words, the optimal thing for an individual to do critically depends on what others are doing at the same time (like in parlor games). The outcome of the game is related to reproductive success, and the payoffs determine fitness. Trivers (1971) suggested that the evolution of cooperative behavior could be understood in terms of reciprocal aid given in repeated interactions between two partners. As discussed above, in a non-repeated Prisoner’s Dilemma it is best to defect no matter which strategy is adopted by the other player. But if there are repeated encounters between the same two individuals, the idea “I help you and you help me” can lead to the evolution of cooperation. Axelrod (1984) made some important contributions to debates about the conditions under which cooperation can emerge under repeated iterations from his computer tournaments. He invited game theorists and other social and behavioral scientists familiar with the Prisoner’s Dilemma to submit strategies for a multiplayer tournament. In the first of these contests each strategy was paired with itself, with a random strategy, and with each of the other submitted strategies: each strategy pair playing two hundred rounds. Strategies were scored according to the total number of points earned in all these pairings, with 3 points each for mutual cooperation, a 5/0 split where one defected and one cooperated, and 1 point each if both defected (i.e., a record of mutual cooperation throughout two hundred plays of pairing earned 600 points; while a record of 1,000 points could be attained by continuously defecting when the partner played cooperation in all plays, thus earning 0 points).
How should a rational player have selected a strategy, assuming all other players are rational? Because both players know that the game will end after two hundred rounds, we can use backward induction. Thus, there is no incentive to cooperate in the last round because the same analysis applies as for the one-shot Prisoner’s Dilemma. Since we “know” what will happen on the last round, defection on the first-to-last round is also the “rational” approach to take. Since we also “know” this, defection is the correct move on the second-to-last round, and so for. The only strict Nash equilibrium is “always defect” (ALLD). However, the winning strategy, submitted by game theorist Anatol Rapoport, was “tit-for-tat” (TFT, which cooperates in the first stage and then does what the other player has done in the previous round). Why did this strategy perform so well? The reason is simple: even though ALLD wins TFT in individual pairings, the aggregate score of the former strategy is meager. When paired with TFT, ALLD wins on the first play but after that there is a continuous defection (TFT scores 199 and ALLD scores 204). When ALLD is paired with ALLD, both will receive a score of 200 at the end. When TFT is paired with TFT, their final score will be 600. Thus, the results of this tournament seem to suggest that cooperation can indeed evolve by direct reciprocity. But there are two problems with Axelrod’s original tournaments. The first is that in real-world situations, unlike in an errorfree digital universe, individuals incur in mistakes (Nowak and Sigmund, 1994). In the presence of mistakes, two TFT players can achieve a low payoff. A single mistake moves the game from mutual cooperation to alternating between cooperation and defection, and a second mistake can lead to mutual defection (TFT cannot correct
224 M. Santos i E. Szathmáry
mistakes). But even if we stick to the error-free digital universe, a second problem arises when interpreting the results. Both Hamilton’s inclusive fitness and Trivers’ reciprocal altruism as in the iterated Prisoner’s Dilemma rely fundamentally on the same principle: the positive assortment of helping behaviors (Fletcher and Zwick, 2006). This can perhaps be easily understood using Hamilton’s (1975) mating pool mode of reproduction (figure 1). Assume the simplest situation of randomly formed temporary groups, with 2 individuals that interact in the one-shot Prisoner’s Dilemma game and then are pooled back to the global population. The process is repeated again for successive “generations” (encounters) of the game. Assume a population with the two strategies, ALLD and TFT, initially at the same frequency. As indicated earlier, the outcome of the game is related to reproductive success, and the payoffs (the same as those given by Axelrod) determine fitness. At “generation 1” three different groups are formed: ALLDALLD, ALLD-TFT, and TFT-TFT at frequencies 0.25, 0.5, and 0.25, respectively. It is easy to see that after the first interaction the average payoff of ALLD is 0.5 × 1 + 0.5 × 5 = 3 (i.e., in ALLD-ALLD groups both partners will be scored 1 and in ALLD-TFT groups ALLD will be scored 5), and that of TFT is 0.5 × 0 + 0.5 × 3 = 1.5. The scores at “generation 2” (and at later generations) are somewhat more difficult to calculate because TFT is a conditional cooperator. It means that after the first encounter with TFT it will continue cooperating, but after the first encounter with ALLD it will defect. Without going into the details, a simple computer program shows that eventually ALLD replaces TFT, so defection prevails. This is exactly what Hamilton (1975) concluded: with random group formation (random encounters at each generation) altruism can-
not progress, and positive selection of altruism is only possible when altruists tend to settle with altruists. Note that under purely positive assortment, only two groups are formed at “generation 1”: ALLD-ALLD and TFT-TFT at frequencies 0.5 and 0.5, respectively. It then becomes clear that TFT wins because it will have a higher score than ALLD. By letting TFT-TFT play for two hundred rounds in a row, Axelrod’s computer tournaments guaranteed positive assortment and cooperation succeeded. In summary, reciprocal altruism does not seem to be fundamentally different from inclusive fitness or multilevel selection. WHY DO HUMANS COOPERATE? Kin selection can explain why cooperation in the animal world is largely associated with family life (although a number of authors have questioned the primarily relevance of the relatedness component in the evolution of eusociality; Gadagkar, 2001; Wilson and Hölldobler, 2005). However, human behavior is unique in that cooperation occurs in large societies composed of many unrelated individuals. It is unlikely that reciprocal altruism might explain close cooperation in moderately large groups of a few hundred or a few thousand people (not to speak of millions in our large-scale societies) since most encounters between unrelated individuals will happen only once or a very few times during a lifespan. For instance, even in the relatively small network of scientific co-authorship (collaboration), there is a “small world” component—namely, the tendency for scientists to publish with only a few fellows (Albert and Barabási, 2002). Human societies are thus an interesting special case to study the evolution of cooperation. It is essential to summarize here the con-
The evolution of cooperation 225
tribution of game theory to the design of experiments beyond the Prisoner’s Dilemma aimed at understanding how individuals behave when engaged in strategic interactions. Perhaps the single most important point to make is that both altruistic cooperation and altruistic punishment (helping others at a cost to oneself) are often observed, particularly when individuals face a social dilemma. The reasons why we observe extensive cooperation in humans are the subject of some speculation, but “they come down to the plausible insight that human social life is so complex, and the rewards for prosocial behavior so distant and indistinct, that adherence to general rules of propriety, including the strict control over such deadly sins of anger, avarice, gluttony, and lust is individually fitness-enhancing” (Gintis, 2008, p. 50). In all the games described below subjects are anonymous to each other, they are college students who are recruited by bulletin board and newspaper announcement, and they are paid real money. They are instructed to fully understand the rules and the payoffs of the games. A more comprehensive account can be found in Gintis (2008, chap. 3).
sponders frequently reject offers below 30%. These experiments have been run in various countries around the world, including some where the amount of money at stake is substantial, and the results are similar. Apparently most people prefer nothing to something that is perceived as unfair, and punish the proposer accordingly.
Ultimatum game
Public goods game
A player called the “proposer” is given a sum of money, say €10, and is instructed to give the second player, called the “receiver”, any amount from €1 to €10. The responder can either accept or reject the offer. The catch is that if the responder rejects the offer, neither receives anything. The Nash equilibrium is to accept the minimum amount, so a “rational” proposer will give €1 and a “rational” receiver will accept the offer. What happens in fact is that proposers routinely offer responders a substantial share (50% being the modal offer), and re-
This is an n-person game that typically involves a group of subjects each of which is given an initial sum of money, say €10, and told they can either keep it (“private account”) or deposit it in a group (“common”) account. The experimenter then increases the common account by, say, doubling it and then equally distributes the resulting amount of money among the group. The best solution for the group is for everyone to put €10, enabling each subject to double the initial quantity. But the unique Nash equilibrium for each player is to put
Dictator game Here a player called the “dictator” receives a sum of money but, in contrast to an ultimatum game, after offering, the dictator keeps whatever amount of money he does not choose to give to the recipient. Obviously, a “rational” dictator will give nothing to the recipient. The results show that although some subjects will indeed keep all of the money, not all will. Actually, a frequent outcome in some recent experiments was to split the money down with offers varying between 50% and 0%, with about 20% of subjects keeping all the money. These results provide clear confirmation of altruistic and “irrational” (from a game theoretical analysis) behavior among humans.
226 M. Santos i E. Szathmáry
nothing, in which case everyone ends up with the original amount. Each individual following the Nash strategy hopes to keep his or her private account and free ride on the voluntary contributions of the rest. Contributing to the common account is risky since, in the worst case of only one contributor, this (altruistic) subject will end up with substantially less money than the initial €10. When the game is played for a number of rounds, the results show that the average initial contribution of the individuals to the common account continually decreases along the time period involved (say ten rounds), clearly indicating that cooperation declines. However, when cooperators are given the opportunity to punish defectors, cooperation is sustained or even increases during the game. These experiments give some credibility to the suggestion that altruistic punishment may be an important ingredient to sustaining cooperation in human societies (e.g., Fehr and Gächter, 2002; Boyd et al., 2003; Rockenbach and Milinski, 2006), although there is a huge cross-societal variation (see Herrmann et al., 2008). CONCLUDING REMARKS Strong reciprocity theorists advocate that most people do genuinely care about the welfare of others, and we agree. However, the role of group selection in human evolution is open to strong criticisms. Darwin’s potential solution for social groups to function as an adaptive evolutionary unit (Darwin, 1871, p. 166; see Introduction) is a twosided coin. The “nice” face is within-group cooperation (altruism), but the other side is hostility towards individuals from other groups (“parochialism”). Darwin thus recognized war as a powerful evolutionary force that might foster social solidari-
ty among fellow members of one’s group. Hamilton’s speculation about how this could occur were discussed in the same paper in which he introduced Price’s approach to understand the relative merits that individual and group selection mechanisms have on the evolution of cooperation (Hamilton, 1975); also known as Hamilton’s “Fascist paper” (Hamilton, 1996, pp. 316-317): “Robert Trivers was later to refer to the article that I contributed to Fox’s volume as my ‘Fascist paper’. I believe he was referring not mainly to his own impression but rather to what others were saying about it and particularly to one strong response by a noted anthropologist, S. L. Washburn, in which, singling my paper out of the whole volume, he called it ‘reductionist, racist, and ridiculous’. Washburn obviously didn’t like the whole thing but focused his objection on some of my more speculative paragraphs concerning the warlike propensities of pastoral people and the possible involvement of these in current trends in the histories of Old World civilizations… Be that as it may, whether my paper really is racist or absurd I will leave to the reader’s judgment and just comment that I have hardly changed my opinions and certainly haven’t with regard to what Washburn indicated as the most offending passage”. We are clearly moving on shaky grounds here, but cannot oversee the empirical importance of both altruism and hostility to members of other groups. A recent gametheoretic analysis suggests that under conditions likely to have been experienced by late Pleistocene and early Holocene humans, both altruism and parochialism could have evolved jointly by promoting group conflict. This coevolution apparently
The evolution of cooperation 227
helps explain why group boundaries have such a powerful influence on human behavior (Choi and Bowles, 2007). Choi and Bowles are cautious enough and on page 640 stress that “we have not shown that a warlike genetic predisposition exists, only that should one exist, it might have coevolved with altruism and warfare in the way we have described”. We will not question here the results of this work, or Bowles’ (2006) empiricallybased support for Darwin’s argument that a possible explanation for the evolution of human altruism is that groups with more altruists survive when groups compete among them. It should be stressed, however, that the definition of altruism they used is relative to the local group, and not to the population as a whole. This leads to the confusing situation where cooperation can be favored because it provides a direct benefit to the cooperator. This issue is related to the previously discussed difference between Hamilton’s vs. Sober and Wilson’s definitions of altruism. A detailed analysis of this problem and how the previous conclusions can potentially change would be extremely useful. Our final remark relates to the tricky question at the end of the introduction: Should we punish Russia for the hostile act against Georgia? To some commentators Georgia’s invasion could lead the World to a similar state of affairs than those during the Cold War. It thus might be interesting to realize here that superpower relations at that time were considered by some as a sequential rather than a simultaneous move in a Prisoner’s Dilemma game: either player had the option of moving first in an eventual nuclear conflagration (the defect-defect Nash equilibrium). In this case, the best option was a first strike. Few people are aware that John von Neumann (the father of game theory) and Bertrand Russell both advocat-
ed a first strike: “we attack at one o’clock (it is now 12:59), and the enemy is either too devastated, too demoralized, or too rational to strike back (defect-cooperate). But if for whatever reason … the attack provokes retaliation, nuclear exchange (defect-defect) is still preferable to an unprovoked attack (cooperate-defect)” (Field, 2001, p. 169). Would this outcome have been without a dramatic cost? One cannot avoid thinking that sometimes it may be a relief to know that politicians are irrational! ACKNOWLEDGMENTS We thank Enrico Rezende and Lluís Serra for helpful comments on an earlier draft. MS is supported by grants CGL2006-1342301/BOS from the Ministerio de Ciencia y Tecnología (Spain) and 2005SGR 00995 from Generalitat de Catalunya to the Grup de Biología Evolutiva, ES is supported by the National Office for Research and Technology (NAP 2005/KCKHA005) in Hungary. MS and ES are supported by funding of the INCORE project under the Sixth Research Framework Programme of the European Union. The views expressed in this publication are the sole responsibility of the authors and do not necessarily reflect the views of the European Commission. BIBLIOGRAPHY Albert, R.; Barabási, A.-L. (2002). «Statistical mech anics of complex networks». Rev. Mod. Phys., 74: 47-97. Axelrod, R. (1984). The evolution of cooperation. New York: Basic Books. Axelrod, R.; Hamilton, W. D. (1981). «The evolution of cooperation». Science, 211: 1390-1396. Bijma, P.; Wade, M. J. (2008). «The joint effects of kin, multilevel selection and indirect genetic effects on response to genetic selection». J. Evol. Biol., 21: 1175-1188.
228 M. Santos i E. Szathmáry
Bowles, S. (2006). «Group competition, reproductive levelling, and the evolution of human altruism». Science, 314: 1569-1572. Boyd, R.; Gintis, H.; Bowles, S.; Richerson, P. J. (2003). «The evolution of altruistic punishment». Proc. Natl. Acad. Sci. USA, 100: 3531-3535. Burt, A.; Trivers, R. (2006). Genes in conflict. The biology of selfish genetic elements. Cambridge: The Belknap Press of Harvard University Press. Buss, L. W. (1987). The evolution of individuality. Princeton: Princeton University Press. Choi, J.-K.; Bowles, S. (2007). «The coevolution of parochial altruism and war». Science, 318: 636-640. Darwin, C. (1859). On the origin of species by means of natural selection or the preservation of favoured races in the struggle for life. London: Murray. — (1871). The descent of man, and selection in relation to sex. 2 vol. London: Murray. Dawkins, R. (1976). The selfish gene. Oxford: Oxford University Press. Eshel, I. (1972). «On the neighbor effect and the evolution of altruistic traits». Theor. Pop. Biol., 3: 258277. Fehr, E.; Gächter, S. (2002). «Altruistic punishment in humans». Nature, 415: 137-140. Field, A. J. (2001). Altruistically inclined? The behavioral sciences, evolutionary theory, and the origins of reciprocity. Ann Arbor: The University of Michigan Press. Fletcher, J. A.; Zwick, M. (2006). «Unifying the theories of inclusive fitness and reciprocal altruism». Am. Nat., 168: 252-262. Gadagkar, R. (2001). The social biology of Ropalidia marginata. Cambridge: Harvard University Press. Gánti, T. (2003). The principles of life. Oxford: Oxford University Press. Gintis, H. (2008). The bounds of reason: game theory and the unification of the behavioral sciences. Princeton: Princeton University Press. [In press] Haldane, J. B. S. (1932). The causes of evolution. London: Longmans. — (1955). «Population genetics». New Biology, 18: 3451. Hamilton, W. D. (1964). «The genetical evolution of social behaviour, I & II». J. Theor. Biol., 7: 1-52. — (1975). «Innate social aptitudes of man: an approach from evolutionary genetics». In: Fox, R. [ed.]. Biosocial Anthropology. London: Malaby Press, 133-153. — (1996). Narrow roads of gene land. The collected papers of W. D. Hamilton. Vol. 1. Evolution of social behaviour. Oxford: W. H. Freeman. Hawking, S. W. (1988). A brief history of time. From the Big Bang to black holes. New York: Bantam Books.
Herrmann, B.; Thöni, C.; Gächter, S. (2008). «Antisocial punishment across societies». Science, 319: 1362-1367. Hobbes, T. (1651). Leviathan, or the matter, forme, and power of a common-wealth ecclesiastical and civil. Indianapolis: Hackett Publishing, 1994. Maynard Smith, J. (1964). «Group selection and kin selection». Nature, 201: 1145-1147. — (2002). «Commentary on Kerr and Godfrey-Smith». Biol. Philos., 17: 523-527. Maynard Smith, J; Price, G.R. (1973). «Logic of animal conflict». Nature, 246: 15-18. Maynard Smith, J; Szathmáry, E. (1993). «The origins of chromosomes I. Selection for linkage». J. Theor. Biol., 164: 437-446. — (1995). The major transition in evolution. Oxford: Oxford University Press. Nowak, M. A.; Sigmund, K. (1994). «The alternating prisoner’s dilemma». J. Theor. Biol., 168: 219-226. Okasha, S. (2006). Evolution and the levels of selection. Oxford: Clarendon Press. Price, G. R. (1970). «Selection and covariance». Nature, 227: 520-521. — (1972). «Extension of covariance selection mathematics». Ann. Hum. Genet., 35: 485-490. Queller, D. C. (1997). «Cooperators since life began». Q. Rev. Biol., 72: 184-188. Rice, S. H. (2004). Evolutionary theory. Massachusetts: Sinauer Associates. Rockenbach, B.; Milinski, M. (2006). «The efficient interaction of indirect reciprocity and costly punishment». Nature, 444: 718-723. Santos, M.; Szathmáry, E. (2008). «Genetic hitchhiking can promote the initial spread of strong altruism». BMC Evol. Biol., 8: 281. Santos, M.; Zintzaras, E.; Szathmáry, E. (2003). «Origin of sex revisited». Orig. Life Evol. Biosph., 33: 405-432. — (2004). «Recombination in primeval genomes: a step forward but still a long leap from maintaining a sizeable genome». J. Mol. Evol., 59: 507-519. Sober, E.; Wilson, D. S. (1998). Unto others. The evolution and psycology of unselfish behavior. Cambridge: Harvard University Press. Szathmáry, E.; Demeter, L. (1987). «Group selection of early replicators and the origin of life». J. Theor. Biol., 128: 463-486. Szathmáry, E.; Santos, M.; Fernando, C. (2005). «Evolutionary potential and requirements for minimal protocells». Top. Curr. Chem., 259: 167-211. Trivers, R. L. (1971). «The evolution of reciprocal altruism». Q. Rev. Biol., 46: 35-57. Wilson, D. S. (1975). «A theory of group selection». Proc. Natl. Acad. Sci. USA, 72: 143-146.
The evolution of cooperation 229
— (1979). «Structured demes and trait-group variation». Am. Nat., 113: 606-610. Wilson, D. S.; Wilson, E. O. (2007). «Rethinking the theoretical foundation of sociobiology». Q. Rev. Biol., 82: 327-348. Wilson, E. O.; Hölldobler, B. (2005). «Eusociality: Origin and consequences». Proc. Natl. Acad. Sci. USA, 102: 13367-13371. Williams, G. C. (1966). Adaptation and natural selection.
A critique of some current evolutionary thought. Princeton: Princeton University Press. — (1996). Preface to Adaptation and natural selection. A critique of some current evolutionary thought. Princeton: Princeton University Press, 1966. Zintzaras, E.; Santos, M.; Szathmáry, E. (2002). «“Living” under the challenge of information decay: the stochastic corrector model vs. hypercycles». J. Theor. Biol., 217: 167-181.
DOI: 10.2436/20.1501.02.88
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 231-243
ECONOMIA, GENS I EVOLUCIÓ. UNA NOVA APROXIMACIÓ A L’ESTUDI DE L’HOMINITZACIÓ Arcadi Navarro Institució Catalana de Recerca i Estudis Avançats i Institut de Biologia Evolutiva. Adreça per a la correspondència: Arcadi Navarro. Institut de Biologia Evolutiva (UPF-CSIC). Plaça Charles Darwin, 1. 08003 Barcelona. Adreça electrònica: arcadi.navarro@upf.edu. RESUM Des de la publicació, fa cent cinquanta anys, de On the origin of species, l’estudi científic de l’evolució de les característiques específiques dels humans ha estat el focus de grans esforços provinents de diverses àrees de la ciència. Avui dia, després d’un segle i mig de recerca, s’han acumulat resultats impressionants sobre què és allò que, tot separant-nos de la resta de primats, «ens fa humans», i sobre com pot haver evolucionat. En els darrers anys, una nova àrea de recerca, la genoeconomia, està començant a fer contribucions importants a l’estudi de l’hominització. Paraules clau: evolució, economia, hominització. ECONOMY, GENES AND EVOLUTION. A NEW APPROACH TO HOMINIZATION STUDIES SUMMARY Since the publication, 150 years ago, of On the origin of species, the scientific study of the evolution of human-specific traits has been the focus of many efforts coming from very different areas of science. Nowadays, after a century an a half of research, impressive results have accumulated, particularly about those traits that, presumably, would “make us human”, setting us apart from the rest of primates, and about how these trait would have evolved. Over the last few years, a new area of research, genoeconomics, has started to make important contributions towards the study of hominization. Key words: evolution, genoeconomics, hominization.
232 A. Navarro
INTRODUCCIÓ: UN REPTE I ALGUNES DIFICULTATS Des de la publicació, fa cent cinquanta anys, de On the origin of species (Darwin, 1859), l’estudi científic de l’evolució de les característiques específiques dels humans ha estat el focus de grans esforços provinents de diverses àrees de la ciència. Començant pel mateix Charles Darwin, el qual el 1871 va publicar The descent of man and selection in relation to sex, alguns d’aquests esforços han estat més ben orientats que no pas altres i, de fet, hi ha hagut èpoques en què les aproximacions pretesament científiques als trets específics dels humans han estat tan errònies que ha costat anys que el camp recuperés el seu prestigi. De totes maneres, després d’un segle i mig de recerca s’han acumulat resultats impressionants sobre què és allò que, tot separant-nos de la resta de primats, «ens fa humans», i sobre com pot haver evolucionat. Només a tall d’exemple, podem mencionar que els paleontòlegs han obtingut una filogènia força completa de la nostra espècie (Jobling et al., 2004), que els genètics han pogut seqüenciar el nostre genoma i comparar-lo amb el d’altres organismes (p. ex., Mikkelsen et al., 2005), que els neurocientífics estan començant a entendre els circuits neuronals que segueixen els nostres pensaments (Fehr i Camerer, 2007) i que els economistes duen a terme detallats experiments que ens permeten entendre les nostres motivacions més íntimes a l’hora de resoldre problemes o prendre decisions (Camerer i Fehr, 2004). Alguns dels capítols d’aquest mateix volum contenen revisions d’aquestes àrees, i ben segur que els lectors han tingut l’oportunitat de sorprendre’s davant de les troballes més recents. Tot i l’abundància i indubtable importància de tots aquests descobriments, la seva interpretació s’ha demostrat plena de difi-
cultats. Especialment a l’hora d’esbrinar un aspecte fonamental per entendre la nostra evolució: la base genètica de les característiques específicament humanes. Aquests problemes poden il·lustrar-se amb les llargues discussions, que ja duren dècades, sobre l’heretabilitat de determinats aspectes. En genètica, s’usa el concepte de heretabilitat per descriure la proporció de la variació en un tret que és deguda als gens. Es parla, per exemple, de l’heretabilitat de l’estatura humana, que pot ser d’un 90 %, o la del coeficient intel·lectual (CI), que es calcula que pot estar entre el 50 % i el 70 %. El problema amb aquestes xifres és que són mal interpretades amb facilitat. Se sol pensar que volen dir que l’estatura o el CI estan determinats pels gens en un 90 % o en un 50 %. Això no és pas cert, i només vol dir que de tota la variació que observem en, per exemple, l’estatura de les persones, un 90 % és atribuïble a variacions genètiques, mentre que només un 10 % ho és a variacions ambientals. Aquesta visió no implica cap mena de determinisme. Per exemple, el nombre d’orelles que tenim els humans (normalment dues) és determinat pels gens amb absoluta precisió, però la seva heretabilitat és gairebé del 0 %, simplement perquè no hi ha variacions genètiques en el nombre d’orelles, sinó només ambientals. És a dir, hi ha accidents que, en comptades ocasions, introdueixen variació en un tret determinat genèticament. El cas de l’estatura i el CI és totalment diferent, ja que la influència de l’ambient és omnipresent i contínua. Una altra manera de veure aquest problema és com segueix: si tots fóssim clons l’heretabilitat de qualsevol tret seria zero, independentment del seu grau de determinació genètica, ja que no hi hauria variants genètiques que contribuïssin a la diversitat de cap aspecte dels nostres cossos o de les nostres ments. D’aquí a uns moments tornarem al concepte d’heretabilitat, però el que cal
Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització 233
entendre ara és que, tot i que l’heretabilitat és una mesura formal de la contribució dels gens a la variabilitat de qualsevol característica d’un organisme, i no pas una mesura de determinació genètica, resulta molt fàcil confondre’s. El concepte és tan contraintuïtiu que al llarg de la història ha estat mal interpretat i pitjor usat infinitat de vegades. Aquest és un problema que plaga els estudis sobre l’aparició evolutiva dels trets específicament humans: el terreny que s’explora és força desconegut i s’usen termes i conceptes que cal definir amb molta precisió, però que sempre són fàcils de confondre, ja que la temptació de simplificar-los i adaptar-los a les nostres intuïcions és gran. El mateix concepte de coeficient intel·lectual, per exemple, és una famosa font de conflictes entre científics. Una altra font important de confusió pel que fa a la interpretació dels estudis genètics sorgeix de les noticies sobre «els gens de» o «els gens per a» l’alcoholisme, el llenguatge, la fidelitat, la memòria o les malalties més variades, que apareixen regularment als mitjans de comunicació. El fet que una variant d’un cert gen estigui associada a la variabilitat d’un cert caràcter no vol dir que el gen en qüestió sigui important en la determinació del caràcter. Per exemple, el fet que determinades variants del gen FOXP2 estiguin lligades a problemes en la parla dels seus portadors, no vol pas dir que FOXP2 sigui «el gen del llenguatge». En primer lloc, perquè molts altres gens (desenes o potser centenars) poden estar involucrats i, en segon lloc, perquè la relació de FOXP2 amb el llenguatge pot ser només indirecta o secundària. Perdre les claus d’ignició o treure el pedal de l’accelerador fa que un cotxe no es pugui engegar ni conduir, però totes dues peces són secundàries en relació amb el funcionament d’un cotxe. Les rodes o l’èmbol sí que són crucials. A pesar de tots aquests problemes, i de
molts altres que seria massa llarg explicar, durant els darrers deu anys s’han registrat continus avenços en el nostre coneixement sobre l’arquitectura genètica dels caràcters complexos, especialment de les malalties. Doncs bé: totes les eines desenvolupades per aprofundir en trets humans d’interès sociosanitari, és a dir, per fer entendre la base genètica de les malalties, estan a disposició dels biòlegs evolutius per mirar de conèixer millor l’arquitectura genètica dels caràcters específicament humans. Una frontera que durant els darrers dos anys s’ha mogut amb especial velocitat és la de la genoeconomia, l’estudi de com la variació genètica individual interacciona amb el nostre ambient social per explicar caràcters de caire econòmic, tots específicament humans, com la nostra percepció sobre la justícia d’un intercanvi o la nostra capacitat de pensament estratègic. Curiosament, ens apropem a l’evolució humana, a la genètica de l’hominització, per un camí diferent del que sempre havíem pensat: la major part de novetats no provenen de l’estudi d’algunes capacitats clàssicament considerades «superiors», com ara la racionalitat, el llenguatge, o la capacitat humana per a l’abstracció o la moral, sinó que provenen de l’economia. En el que segueix, revisaré algunes de les línies de recerca més prometedores dins d’aquest nou camp, però primer ens cal entendre per què la genoeconomia és possible avui i quins són els avenços que l’han feta possible. DOS CANVIS DE PARADIGMA Durant els darrers quatre anys hem viscut dos canvis fonamentals en el focus de la recerca biomèdica. Tots dos canvis són de gran importància per a l’estudi dels trets propis dels humans. El primer d’aquests canvis és la genòmica personal. Sembla que
234 A. Navarro
hagin passat dècades, però va ser tot just l’any 2001 que es va fer públic «el» genoma humà. Avui dia sabem que no existeix un únic genoma humà (Pennisi, 2007). Les diferències genètiques entre qualsevol parell de persones que triem comparar són enormes (sempre que no siguin bessons idèntics, és clar). Dins dels tres mil milions de nucleòtids que configuren els nostres genomes, dos éssers humans qualssevol es diferencien en, aproximadament, entre un 0,1 % i un 1 %. Pot no semblar molt, però es tradueix en una diferència entre tres i trenta milions de nucleòtids (Eichler, 2006; Perry et al., 2006; Scherer et al., 2007). Aquestes xifres esdevenen encara més impressionants si mirem més enllà de dues persones i considerem quantes diferències pot haver-hi entre grups més grans d’individus, com ara tota l’espècie humana. I encara més, si és possible, quan ens adonem que (com Tomàs Marquès-Bonet i Lluís Armengol expliquen en aquest mateix volum) les diferències genètiques entre humans no inclouen només mutacions puntuals, que serien anàlogues a tenir, en una biblioteca, dues edicions diferents del mateix llibre. Algunes de les diferències, les variacions en nombre de còpia, són de tal magnitud que són anàlogues a diferents col·leccions de llibres. Són diferències d’una mida tan gran que a voltes inclouen gens complets. Gens que poden estar presents més d’una vegada en una persona, mentre que altres persones n’estan totalment mancades. En aquestes diferències hi ha la base de la nostra individualitat genètica: codifiquen el nostre grup sanguini, el nostre color de pell, el metabolisme diferencial de diverses persones o la seva susceptibilitat a determinades malalties. No és sorprenent que cada vegada entenguem millor les diferències entre els nostres genomes, ja que aquest coneixement és un pas necessari per assolir una de les fites més importants del se-
gle xxi: la medicina personalitzada. La gran quantitat de recursos dedicats a la recerca en aquest camp són un gran avantatge en l’estudi de l’evolució humana, ja que donar compte de la diversitat dels nostres genomes és fonamental per fer avançar l’estudi de les bases genètiques de qualsevol caràcter. El segon canvi de perspectiva va més enllà de la recerca amb propòsits clínics, però en darrer terme també es deriva d’aquesta. Es tracta de la plena acceptació de la importància de la diversitat normal en biologia i en qualsevol aspecte de l’estudi dels humans. Deixant de banda la classificació de la diversitat humana entre «normal» i «patològica», avui dia els científics entenen que la patologia es troba normalment en les cues de les distribucions de conjunts de variables enormement complexos. Els investigadors s’han adonat que no poden entendre la fisiologia o la bioquímica de la malaltia sense una perspectiva global del continu al qual pertanyen els estats patològics. Així doncs, l’exploració detallada de les diferències individuals a qualsevol nivell, des de les molècules fins al comportament, ha començat. I un cop més, els resultats d’aquesta empresa seran beneficiosos per a la nostra comprensió de l’evolució dels trets que, al llarg de l’evolució, ens han fet humans. En resum, tots dos canvis han fet possible la genoeconomia. No solament perquè el camp pugui beneficiar-se de les eines i les tècniques creades per estudiar l’arquitectura genètica de la malaltia, sinó perquè l’ambient intel·lectual ha esdevingut propici. Mai com ara no s’havia entès la importància cabdal de la diversitat individual a l’hora de crear el context en què vivim. I la diversitat és la matèria primera de l’evolució.
Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització 235
ESTUDIS AMB BESSONS La genoeconomia va començar a mitjan el segle xx, quan, en els estudis clàssics de bessons, es van començar a considerar algunes variables (anomenades fenotips en termes tècnics) que estaven relacionades, directament o indirectament, amb l’economia (Jobling et al., 2004). Aquests estudis van revelar contribucions genètiques relativament importants a alguns fenotips, com ara els ingressos, el coeficient intel·lectual, el nivell educatiu, la tendència a afrontar riscos, el comportament emprenedor i moltes altres característiques relacionades amb l’economia (Martin et al., 1997; Boonsma et al., 2002; Bouchard et al., 2003). Els estudis clàssics amb grups de bessons estimen l’heretabilitat (la proporció de la diversitat d’un caràcter que es pot atribuir a la diversitat genètica) comparant bessons idèntics (que són genèticament iguals, clons que comparteixen el 100 % dels gens) amb bessons fraternals (que, com els germans normals, comparteixen el 50 % dels gens). Si, per a un fenotip concret els bessons idèntics es comporten de manera tan semblant com ho fan els bessons fraternals, la interpretació és que l’heretabilitat del fenotip en qüestió ha de ser baixa i que, per tant, la contribució de la diversitat genètica a la diversitat dels caràcters mesurats ha de ser baixa. Si, contràriament, els bessons idèntics són més similars entre ells que no pas els bessons fraternals, aleshores la proporció de la variabilitat del caràcter que expliquen les variants genètiques (és a dir, l’heretabilitat) ha de ser alta, ja que l’única cosa que els bessons idèntics tenen més en comú entre ells que els bessons fraternals són, precisament, variants genètiques. Els aspectes clau de qualsevol d’aquests estudis tenen a veure, naturalment, amb la seva validesa. Com de representatius de la variabilitat humana general són els bessons
que s’estudien. Per exemple, és fàcil veure que la vida dels bessons és especial. Els bessons idèntics són tractats de manera més semblant pel seu entorn (p. ex., perquè és fàcil que es confonguin?). Els treballs més moderns han aconseguit superar aquestes dificultats i els estudis rigorosos que aborden fenotips ben diversos amb grups de bessons se succeeixen des de fa temps. De fet, els estudis amb bessons són, en molts casos, l’única peça d’evidència experimental del fet que una malaltia complexa té un component hereditari i de la qual, per tant, paga la pena estudiar l’arquitectura genètica. Com més baixa és l’heretabilitat d’una malaltia, més magres són les possibilitats de trobar algun factor genètic que l’estigui influint. Un cop més, cal insistir que convé anar amb molta cura amb l’ús del concepte d’heretabilitat. Si la recerca científica revela que un tret concret té una heretabilitat d’un 60 %, no significa pas que el 60 % dels casos d’aquest fenotip estiguin «causats pels gens». Com hem vist fa uns paràgrafs, el que vol dir és que si tots fóssim clons però el rang d’ambients en què ens movem es mantingués, només veuríem el 40 % de la diversitat fenotípica que veiem ara. Posat en termes simètrics, si tots ens criéssim exactament en el mateix ambient, veuríem aproximadament un 60 % de la variabilitat que ara veiem. També és important adonar-se que el fet que un tret tingui una heretabilitat del 60 % no vol pas dir quelcom tan simple com que un sol gen expliqui el 60 % de la variabilitat fenotípica que observem. La major part dels trets humans, especialment els que ens fan únics entre els primats, són poligènics, és a dir, estan codificats per diversos gens, i les complexes interaccions entre aquests gens o entre els gens i l’ambient són extremadament difícils d’esbrinar. Aquest és, per cert, un altre punt important: en la majoria d’ocasions els gens i l’ambient no
236 A. Navarro
actuen independentment. Els individus, per exemple, seleccionen, o fins i tot construeixen, sota la influència dels seus gens, l’ambient en què han de viure i, per tant, l’entorn en què aquests gens seran expressats. Tot i tenir tots aquests potencials problemes en ment, és encara sorprenent veure com les mesures de l’heretabilitat dels caràcters socioeconòmics són de magnituds similars a les de fenotips físics, com ara determinades malalties (Bouchard et al., 2003). Aquest fet suggereix que el comportament econòmic humà pot estar sotmès a una influència genètica més gran que el que havíem pensat fins ara. L’ASSOCIACIÓ ENTRE VARIANTS GENÈTIQUES I FENOTÍPIQUES Un cop és clar que un fenotip concret té un component genètic, el següent pas és mirar de dissecar-lo amb la màxima precisió. Quants factors genètics influencien el caràcter a estudi? Quins efectes tenen? En quins llocs dels nostres genomes els podem trobar? De quin tipus són? Són variants genètiques puntuals que canvien la manera en què es plega una proteïna, o bé actuen a través de modificacions en el nivell d’expressió de determinats gens? O són potser variants estructurals que contenen gens complets dels quals alguns individus poden tenir moltes còpies? En epidemiologia clàssica, la concurrència en una població amb més freqüència del que s’espera per l’atzar d’un fenotip (el caràcter a estudi) i una variant genètica concreta (p. ex., una versió específica d’un gen, que s’anomena al·lel) rep el nom de associació genètica. Les associacions que més es coneixen són les que s’han pogut detectar entre fenotips relativament senzills, com ara tenir o no tenir una malaltia, i variants genètiques també simples, com ara els polimor-
fismes d’un sol nucleòtid (en anglès, SNP), que són canvis en una sola posició de la cadena de DNA dels quals en la població només es poden trobar dues versions (Cardon i Bell, 2001; WTCCC, 2007). Cal notar que, com sempre passa en estadística, associació no significa causalitat. L’escenari més probable és que la variant genètica, l’al·lel, que ha estat associat a la presència d’un fenotip concret, no hi tingui res a veure causalment. El que sol succeir és que la variant genètica en qüestió (que s’anomena marcador genètic) està associada, al seu torn, amb una tercera variant o grup de variants (que s’anomenen variants causals), que són les que realment contribueixen al fenotip d’interès. Aquest és l’escenari més probable, ja que, entre els milions de variants genètiques que diferencien els humans, només una fracció molt petita té conseqüències (HapMap Consortium, 2003). La major part de variants genètiques no tenen cap efecte funcional sobre cap fenotip, però com que poden estar associades amb variants causals, es poden usar com a marcadors genètics. El disseny experimental més comú de l’epidemiologia clàssica és l’estudi cas-control (Cardon i Bell, 2003). Els estudis cascontrol usen subjectes que tenen un cert fenotip (anomenats casos, normalment una malaltia, però també altres condicions) i miren de determinar si hi ha característiques d’aquests individus que els diferencien dels individus que no presenten el fenotip (anomenats controls). L’epidemiologia clàssica ha servit per demostrar, per exemple, que l’hàbit de fumar és més freqüent en pacients amb càncer de pulmó. Ara bé, les cadenes causals són figues d’un altre paner. Sense més dades o sense la recerca adequada al laboratori la conclusió de l’estudi que acabem de mencionar podria ser que el càncer de pulmó produeix un desig irrefrenable de fumar.
Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització 237
En l’epidemiologia genètica, els estudis cas-control comparen les freqüències de molts marcadors genètics (o de combinacions d’aquests marcadors) entre casos i controls. Els marcadors poden ser qualsevol variant genètica de les que hem vist fins ara. Els casos seran, com abans, pacients que presentin la malaltia o el caràcter sota estudi. El grup de controls estarà format per individus dels quals se sap que no presenten la malaltia o bé que han estat seleccionats a l’atzar entre la població general. Una diferència estadísticament significativa en la freqüència d’una variant genètica entre els dos grups indica una associació de la presència d’un determinat al·lel amb un risc incrementat de patir la malaltia o de presentar el caràcter. Com és lògic, la tasca de seleccionar, entre els milions disponibles, els marcadors genètics que han d’utilitzar-se, és un problema de gran complexitat. De tota manera, els desenvolupaments tecnològics dels darrers anys l’han facilitat considerablement. Avui dia, no solament podem triar entre un catàleg de milions de marcadors genètics predefinits dels quals se sap quines zones del genoma «marquen», sinó que les plataformes de genotipatge d’alt rendiment han disminuït en ordres de magnitud el cost de determinar de quins marcadors genètics és portador cada individu. En termes generals, hi ha dos tipus d’aproximació als estudis d’associació: estudis dirigits o estudis de genoma complet. Els estudis dirigits se centren en una llista de gens candidats o de regions genòmiques d’interès. Aquestes llistes es compilen a partir dels coneixements actuals sobre una malaltia o un caràcter concrets. Per exemple, si s’estudien les bases genètiques de la depressió, té tot el sentit seleccionar marcadors genètics que estiguin dins o ben a la vora dels gens de la ruta de la serotonina. El nombre de marcadors en aquests es-
tudis varia des de tot just uns pocs (fins i tot es pot genotipar un sol marcador) fins a diversos milers. Els estudis de genoma complet examinen marcadors distribuïts per tot el genoma humà. No parteixen de cap hipòtesi prèvia sobre quines poden ser les regions del genoma o els gens amb més o menys influència sobre el caràcter que estudien, sinó que estan dissenyats per mirar de detectar qualsevol possible associació. Aquesta mena d’estudis són possibles gracies a microxips d’alta densitat que permeten genotipar de manera simultània i a un baix cost centenars de milers, o fins i tot milions, de marcadors genètics. Allà on rau la seva força, en la gran densitat dels microxips, és també on es troba la seva principal debilitat. Moltes de les associacions estadístiques que es detecten gràcies a aquests estudis poden ser falsos positius produïts a l’atzar (Weiss i Terwilliger, 2001). Així doncs, no és pas una sorpresa que la correcció d’aquest problema (anomenat problema dels tests múltiples) hagi esdevingut una àrea de recerca altament competitiva. Dues dècades d’estudis d’associació han produït tant èxits com frustracions. La principal causa dels fracassos han estat els molts exemples de putatives associacions que, després de diversos intents fallits de replicació, han estat reconegudes com a falsos positius (Ioannidis, 2001; Ioannidis et al., 2007). En qualsevol cas, un nombre creixent d’associacions han estat replicades i verificades mitjançant diversos mètodes en experiments independents, i això és especialment cert en el cas de la recent allau d’estudis d’associació del genoma complet (p. ex., vegeu WTCCC, 2007). Avui dia, els mecanismes de moltes malalties es coneixen prou bé perquè una panòplia cada cop més completa de medicaments s’estigui desenvolupant i posant al servei de la salut pública. Posar aquesta mena d’estudis al servei
238 A. Navarro
de la recerca en biologia evolutiva, especialment pel que fa a l’hominització, era només una qüestió de temps. MESURANT ELS FENOTIPS ADEQUATS. L’ECONOMIA EXPERIMENTAL El comportament humà pot mesurarse en una infinitat de maneres i, per tant, triar les adequades és un afer important. Si el que volem és estudiar genoeconomia, quins fenotips hem de mesurar? A través de la història, els científics socials han usat diverses mesures indirectes del comportament social. Fenotips com ara la trajectòria professional, els ingressos, el nivell de deute o la quantitat de capital acumulat ens proporcionen mesures distals de fenotips econòmics i han estat d’ús general en molts estudis (Camerer 2003; Camerer i Fehr 2003). Les mesures directes del comportament econòmic han estat menys utilitzades, però cada cop es presta més atenció a variables com ara l’aversió al risc, la paciència o el grau de confiança en els altres, que no solament són variables més simples que les mesures indirectes, sinó que són fenotips més proximals al procés de presa de decisions que no pas els que mencionàvem abans, de manera que és raonable esperar que la seva arquitectura genètica sigui més simple que no pas la d’un fenotip tan complex com els ingressos anuals d’una persona. Independentment com siguin de proximals o distals determinats fenotips, totes aquestes mesures tenen quelcom en comú: s’obtenen a través de qüestionaris d’autoavaluació que contesten els subjectes experimentals. Moltes de les respostes d’aquests qüestionaris, que reflecteixen el que l’individu pensa de si mateix o allò que desitja que altres pensin d’ell, no poden ser verificades, amb el consegüent pro-
blema de credibilitat dels resultats d’aquests estudis. En les darreres dècades ha sorgit, des del camp de l’economia experimental, una aproximació radicalment diferent a les mesures del comportament humà. L’economia experimental és una branca de les ciències econòmiques que té les mateixes característiques que qualsevol altra ciència experimental: aspira a guanyar coneixement sobre el comportament dels humans en condicions controlades, amb l’objectiu d’avaluar teories o assumpcions sobre el funcionament de les nostres ments o d’obtenir dades que puguin fer-se servir per desenvolupar noves hipòtesis (Camerer, 2003). Els economistes experimentals usen un ampli ventall de tipus d’estudi, dissenyats per durse a terme tant al laboratori com al camp. Aquests experiments (anomenats jocs) tenen diversos avantatges sobre els qüestionaris d’autoavaluació o d’avaluació per part de tercers (Camerer, 2003; Ebstein, 2006), ja que són més realistes. Motiven els subjectes oferint-los recompenses monetàries, de manera que la tendència a fingir disminueix, ja que les persones que participen en l’experiment han de respondre amb fets (guanyant o perdent diners), i no solament amb paraules. Un altre avantatge dels estudis d’economia experimental és que permeten als investigadors obtenir mesures molt simples de les diferents actituds o estratègies que poden adoptar els subjectes en el context d’un joc. Per exemple, hi ha jocs dissenyats per estudiar les preferències socials que mesuren l’actitud que els subjectes experimentals tenen envers els interessos i el benestar dels altres. Aquests jocs, com ara el joc de l’ultimàtum, el joc del dictador o el joc dels béns públics (vegeu l’article de Mauro Santos i Eörs Szathmary en aquest mateix volum per a una revisió d’aquest tema) permeten mesurar el com-
Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització 239
portament dels subjectes en termes numèrics senzills que es tradueixen en altruisme, confiança o preferències per l’equitat o la reciprocitat. Un exemple canònic és el del joc de l’ultimàtum. En la versió original d’aquest joc dos jugadors interaccionen una única vegada i de manera anònima. A un jugador se li assigna el paper de proposador i a l’altre el de triador. El proposador ha de fer una oferta sobre com repartir-se una suma de diners amb el triador. El triador pot, si vol, acceptar l’oferta o bé, si així ho desitja, rebutjar-la. Si el triador rebutja l’oferta, tots dos perden els diners; si, en canvi, l’accepta, els diners es reparteixen segons l’oferta del proposador. En aquesta mena d’escenari, si els humans fóssim maximitzadors racionals, interessats només en el benefici propi, tal i com alguns pensadors clàssics havien defensat, el resultat hauria de ser clar. El proposador hauria de fer una oferta de mínims, amb pocs diners per al triador, i el triador hauria d’acceptar qualsevol oferta que no fos de zero diners. Sorprenentment, aquesta mena de comportament racional gairebé mai no es dóna. El joc de l’ultimàtum s’ha jugat milers de vegades arreu del planeta i s’ha pogut observar que les persones estan disposades a sacrificar els seus guanys si reben ofertes que poden considerar-se injustes o desequilibrades. En aquest sentit, no és estrany que hi hagi triadors que rebutgin ofertes que no siguin de, almenys, el 20 % o el 30 % dels diners. Aquest comportament s’ha descrit com a càstig altruista, perquè castiga individus anònims a canvi d’un cost per a la persona que imposa el càstig: el beneficiari és la societat i el benefici per al castigador és només indirecte. El llindar a partir del qual es rebutgen les ofertes pot interpretar-se com una mesura numèrica simple de la tendència a l’equitat i a la cooperació o de l’aversió envers ofertes poc generoses.
Encara que les mesures obtingudes en aquests experiment siguin interpretables, el que no pot negar-se és la seva simplicitat, ni tampoc el fet que són quantitatives i repetibles, ja que els experiments es poden reproduir en qualsevol altre laboratori d’arreu. En aquest sentit, poden ser considerades com a mesures atòmiques del comportament econòmic humà. Com a tals, han esdevingut el paradigma experimental central de la genoeconomia. De la mateixa manera que els investigadors en neuroeconomia estudien neuroimatges del cervell dels subjectes mentre aquests realitzen determinades tasques o juguen jocs com els que acabem de descriure, els investigadors en genoeconomia genotipen els individus experimentals i intenten buscar marcadors genètics associats a determinades actituds o estratègies. UN ESTUDI GENOECONÒMIC AMB BESSONS Un dels primers estudis moderns de genoeconomia va ser publicat l’any 2007 per Magnus Johannesson i els seus col· laboradors (Wallace et al., 2007) del Massachussets Institute of Technology (MIT), i constitueix el primer intent de mesurar l’heretabilitat dels resultats d’un joc econòmic. En concret, els autors usen un disseny experimental clàssic amb bessons per mesurar l’heretabilitat de l’estratègia dels triadors en el joc de l’ultimàtum. Els seus resultats són sorprenents: l’heretabilitat del comportament dels triadors, mesurat com el llindar de rebuig d’una oferta, és d’un 42 %. És a dir, que les diferències genètiques entre individus ajuden a explicar el 42 % de la diversitat que observem en el nivell de l’oferta que estan disposats a rebutjar els triadors. De tota manera, abans d’entusiasmarnos i fer afirmacions contundents, caldria
240 A. Navarro
tenir en compte totes les dificultats que hem mencionat fins ara, i potser algunes altres. L’evidència no és prou definitiva, però, en qualsevol cas, els resultats són els que són i diversos grups de recerca preparen nous estudis amb grups més grans de bessons i amb diferents bateries de jocs econòmics. Des del punt de vista evolutiu, l’interès de l’estudi de MIT va molt més enllà de la demostració que la influència dels factors genètics en el joc de l’ultimàtum és gran. En primer lloc, aquest estudi ajuda a contextualitzar dècades de recerca en genètica del comportament i neurociència. Per exemple, els nivells en sang de determinades hormones, com ara la testosterona o l’oxitocina, s’han demostrat correlacionats amb el comportament dels participants en jocs econòmics (Kosfeld et al., 2005; Rot et al., 2006). Així doncs, té sentit hipotetitzar que els individus amb diferents nivells basals de certes hormones (nivells que, certament, estan sota la influència dels gens) poden tenir tendència a mostrar diferents comportaments en determinats experiments. A més, aquest estudi és consistent amb els estudis d’heretabilitat mencionats més amunt, que van detectar considerables efectes genètics en una llarga llista de variables socioeconòmiques, com ara la religiositat o les preferències polítiques. En segon lloc, aquest estudi té importants implicacions evolutives. Se sap ben poc sobre l’evolució de trets com el sentit d’equitat o, de fet, sobre qualsevol dels fenotips que hem vist fins ara. Alguns autors argumenten que el càstig altruista reflecteix una tendència universal que va ser adaptativa per als nostres avantpassats, perquè ajudava a mantenir la cooperació entre individus no emparentats. Altres basen les seves explicacions en models de reciprocitat indirecta basats en la gestió de la reputació. El treball del MIT no pot solucionar aquesta mena de dubtes, però certament serveix
per demostrar un requisit fonamental per a l’evolució per selecció natural: que els fenotips seleccionats siguin heretables. En altres paraules, per tal que un caràcter favorable augmenti de freqüència en la població per acció de la selecció natural, cal que hi hagi variants genètiques que contribueixin al caràcter. Si tota la variació d’un fenotip és ambiental, la selecció darwinista no hi pot actuar. És molt interessant notar que hi ha heretabilitat, és a dir, un component genètic, en les estratègies de rebuig del joc de l’ultimàtum. Immediatament vénen al cap preguntes fascinants. Si encara hi ha diversitat genètica, vol això dir que no hi ha una estratègia òptima? O vol dir que, segons les circumstàncies, hi ha diverses estratègies que són afavorides per la selecció natural? Finalment, el treball de Johannesson i els seus col·laboradors apunta a la interessant possibilitat que una de les raons que, al llarg de la història, han fet tan difícil d’entendre i modelar formalment la diversitat de comportaments humans, és que aquests comportaments poden tenir un component genètic important. ESTUDIS D’ASSOCIACIÓ EN GENOECONOMIA El març de 2008, Richard Ebstein i els seus col·legues (Knafo et al., 2008), de la Universitat de Haifa, van publicar els resultats del primer estudi que testejava l’associació d’una variant genètica amb el comportament dels jugadors en el joc del dictador. Aquest joc és similar al joc de l’ultimàtum, però és un dels jugadors (el «dictador») qui decideix com vol distribuir els diners. L’altre jugador (el receptor) es limita a un paper passiu, en què només pot acceptar el que li dóna el seu anònim company. Ja que el receptor no té cap poder i el dictador no està
Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització 241
sotmès a cap mena d’influència, els diners que el dictador decideix cedir solen interpretar-se com a mesures d’altruisme en estat pur. Atesos els precedents, els lectors no se sorprendran de saber que el comportament dels dictadors normalment es desvia de la maximització racional (que incitaria a quedar-se amb tots els diners). Els dictadors habitualment regalen una bona quantitat de diners als receptors. Aproximadament un 80 % dels individus comparteixen els seus diners i, en el 20 % dels casos, es reparteixen meitat i meitat (Camerer, 2003). En l’estudi d’Ebstein es va examinar una sola variant genètica: un polimorfisme del gen del receptor de l’arginina vasopressina 1a (AVPR1a). El gen AVPR1a presenta, entre d’altres variants, un element genètic que té dues formes (l’al·lel «llarg» i l’al·lel «curt»). Aquests dues variants han estat prèviament associades a comportaments socials, especialment a l’autisme (Yirmiya et al., 2006). A més, el gen AVPR1a ha estat associat amb el comportament sexual d’una espècie de rosegadors de camp (Lim et al., 2004; Hammock et al., 2005; Hammock i Young, 2005, 2006; Young i Hammock, 2007). Totes dues línies d’evidència van inspirar l’estudi dels investigadors de la Universitat de Haifa. Els resultats de l’experiment van ser clars: els individus amb versions curtes del gen AVPR1a fan ofertes significativament menys generoses en el joc del dictador. Aquesta troballa era coincident amb el nivell d’altruisme que aquests mateixos individus deien tenir en un qüestionari d’autoavaluació. Com és habitual en els estudis d’associació, els correlats funcionals de la variant estudiada (és a dir, les potencials variants causals que el marcador genètic podia haver detectar) van investigar-se. En una anàlisi post mortem de teixit cerebral (extret d’individus que no havien participat en el joc) la variant llarga del gen va demostrar-se lligada a una major expres-
sió del gen AVPR1a en l’hipocamp. Els problemes dels estudis d’associació que hem vist en paràgrafs anteriors fan aconsellable prendre’s amb cura aquesta informació. Podria ser perfectament un fals positiu i cal que sigui confirmat amb estudis independents. De tota manera, aquests estudis ja estan en marxa i no trigarem gaire a conèixerne els resultats. Naturalment, la variant que acabem de mencionar no és pas l’única que s’està intentant associar a comportaments econòmics, i tot d’altres grups estan duent a terme els seus projectes d’investigació propis. Un exemple destacat és el de l’estudi de susceptibilitat gen/ambient/edat de Reykjavik (Ages-RS, vegeu Harris et al., 2007). Dins d’aquest estudi, s’estan mesurant diversos fenotips econòmics distals en una mostra de més de dos mil individus. En paral·lel, un panell de gens prèviament relacionat amb fenotips cognitius i neurals s’ha genotipat en aquest individus mitjançant els marcadors genètics adequats. I aquesta no és l’única aproximació al problema: altres investigadors estudien jocs econòmics, i encara altres realitzen estudis de genoma complet. És ben clar que, en els anys a venir, podrem gaudir d’un cos creixent de literatura que ens proporcionarà dades valuosíssimes que lligaran gens amb fenotips econòmics i que ens permetran entendre com poden haver evolucionat aquestes característiques de la nostra espècie. CONCLUSIÓ: EL PROGRAMA DE RECERCA DE LA GENOECONOMIA EVOLUTIVA L’objectiu central de la genoeconomia és esbrinar com les diferències genètiques individuals poden influir, a través de la seva interacció amb l’ambient, en el comportament
242 A. Navarro
econòmic humà. Hem vist, però, que cap ni un dels termes de la frase que encapçala aquest paràgraf no està lliure de problemes, però ser conscient d’aquestes dificultats no és pas ser pessimista. Ben al contrari, cada terme pot ser una paraula clau per a una àrea de recerca extremadament atractiva. Com podem mesurar les influències genètiques? Com podem estimar les interaccions amb l’ambient? Com es poden definir els fenotips adequats? Com es tradueixen associacions genètiques en cadenes causals que ens proporcionin autèntiques explicacions? Si tenen èxit, encara que només sigui parcial, en resoldre aquestes qüestions, els investigadors que treballin en l’àrea estaran fent una cosa que rarament és possible: estaran establint els fonaments d’una nova ciència. Però quina mena de progrés podem esperar? I quins reptes i quines dificultats són les que ens esperen? Les contribucions de la genoeconomia poden ser moltes. Especialment pel que fa a l’estudi de l’evolució humana. El primer tipus de descobriments que podríem esperar és la identificació de les causes, tant genètiques com ambientals (o totes dues a la vegada!) dels comportaments econòmics. Identificar cadenes causals és crucial, ja que pot ajudar a entendre similituds i diferències entre individus o grups. En segon lloc, descriure l’arquitectura genètica dels fenotips econòmics pot ajudar a construir millors models i teories sobre com el comportament humà configura la nostra societat. En tercer lloc, el descobriment dels factors genètics sota fenotips socioeconòmics ens proporcionarà informació fonamental per entendre la història evolutiva d’aquesta mena de fenotips de tanta importància en el procés d’hominització. El darrer punt serà especialment fructífer si les variants genètiques humanes poden comparar-se amb les d’altres espècies de primats. En aquest sentit, és molt prometedor que determi-
nats jocs, com ara el de l’ultimàtum, s’hagin adaptat per ser jugats amb ximpanzés (Jensen et al., 2007a, b). A pesar de tots els problemes potencials, la genoeconomia, especialment en la seva vessant evolutiva, està cridada a proporcionar-nos respostes a algunes de les preguntes que Darwin es va fer fa cent cinquanta anys. Serà un camp pluridisciplinari molt emocionant i, certament, respondrà preguntes que ens acostaran a la història evolutiva de la nostra espècie, però sobretot, serà, com ha de ser qualsevol àrea productiva de la ciència, una font de noves preguntes que ara mateix no podem concebre. No és estimulant intentar imaginar quines poden ser aquestes preguntes? BIBLIOGRAFIA Boomsma, D.; Busjahn, A.; Peltonen, L. (2002). «Classical twin studies and beyond». Nature Reviews Genetics, 3: 872-882. Bouchard, T. J. Jr.; McGue, M. (2003). «Genètic and environmental influences on human psychological differences». J. Neurobiol., 54: 4-45. Camerer, C. F. (2003). Behavioral game theory: experiments in strategic interaction. The roundtable series in behavioral economics. Princeton: Princeton University Press. Camerer, C. F.; Fehr, E. (2003). Measuring social norms and preferences using experimental games: a guide for social scientists. Zuric: Institute for Empirical Research in Economics. — (2006). «When does “economic man” dominate social behavior?». Science, 311: 47-52. Cardon, L. R; Bell, J. I. (2001). «Association study designs for complex diseases». Nature Reviews Genetics, 91-99. Darwin, C. (1859). On the origin of species by means of natural selection. Londres: John Murray. Ebstein, R. P. (2006). «The molecular genetic architecture of human personality: beyond self-report questionnaires». Mol. Psychiatry, 11: 427-445. Eichler, E. E. (2006). «Widening the spectrum of human genètic variation». Nat. Genet., 38: 9-11. Fehr, E.; Camerer, C. F. (2007). «Social neuroeco-
Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització 243
nomics: the neural circuitry of social preferences». Trends. Cogn. Sci., 11: 419-427. Hammock, E. A. [et al.] (2005). «Association of vasopressin 1a receptor levels with a regulatory microsatellite and behavior». Genes Brain Behav., 4: 289301. Hammock, E. A.; Young, L. J. (2005a). «Microsatellite instability generates diversity in brain and sociobehavioral traits». Science, 308: 1630-1634. — (2005b). «Oxytocin, vasopressin and pair bonding: implications for autism». Philos. Trans. R. Soc. Lond. B. Biol. Sci.; 361: 2187-2198. Harris, T. B. [et al.] (2007). «Age, gene/environment susceptibility-Reykjavik study: multidisciplinary applied phenomics». Am. J. Epidemiol., 165: 10761087. Ioannidis, J. P. (2007). «Non-replication and inconsistency in the genome-wide association setting». Hum. Hered., 64: 203-213. Ioannidis, J. P. [et al.] (2001). «Replication validity of genetic association studies». Nat. Genet., 29: 306309. Jensen, K.; Call, J.; Tomasello, M. (2007a). «Chimpanzees are rational maximizers in an ultimatum game». Science, 318: 107-109. — (2007b). «Chimpanzees are vengeful but not spiteful». Proc. Natl. Acad. Sci. USA, 104: 13046-13050. Jobling, M. A.; Hurles, M. E.; Tyler-Smith, C. (2004). Human evolutionary genetics. Origins, peoples and Disease. Nova York: Garland Science. Knafo, A. [et al.] (2008). «Individual differences in allocation of funds in the dictator game associated with length of the arginine vasopressin 1a receptor RS3 promoter region and correlation between RS3 length and hippocampal mRNA». Genes. Brain. Behav., 7: 266-275. Kosfeld, M. [et al.] (2005). «Oxytocin increases trust in humans». Nature, 435: 673-676. Lim, M. M. [et al.] (2004). «Enhanced partner preference in a promiscuous species by manipulating
the expression of a single gene». Nature, 429: 754757. Martin, N.; Boomsma, D.; Machin, G. (1997). «A twinpronged attack on complex traits». Nat. Genet., 17: 387-392. Mikkelsen, T. [et al.] (2005). «Initial sequence of the chimpanzee genome and comparison with the human genome». Nature, 437: 69-87. Pennisi, E. (2007). «Breakthrough of the year. Human genetic variation». Science, 318: 1842-1843. Perry, G. H. [et al.] (2006). «Hotspots for copy number variation in chimpanzees and humans». Proc. Natl. Acad. Sci. USA, 103: 8006-8011. Rot, M. aan het [et al.] (2006). «Social behaviour and mood in everyday life: the effects of tryptophan in quarrelsome individuals». J. Psychiatry. Neurosci., 31: 253-262. Scherer, S. W. [et al.] (2007). «Challenges and standards in integrating surveys of structural variation». Nat. Genet., 39: S7-S15. The HapMap Consortium (2003). «The international HapMap project». Nature, 426: 789-796. Wallace, B. [et al.] (2007). «Heritability of ultimatum game responder behavior». Proc. Natl. Acad. Sci. USA, 104: 15631-15634. Weiss, K. M.; Terwilliger, J. D. (2001). «How many diseases does it take to map a gene with SNPs?». Nat. Genet., 26: 151-157. Welcome Trust Case-Control Consortium (WTCCC) (2007). «Genome-wide association study of 14,000 cases of seven common diseases and 3,000 shared controls». Nature, 447: 661-678. Yirmiya, N. [et al.] (2006). «Association between the arginine vasopressin 1a receptor (AVPR1a) gene and autism in a family-based study: mediation by socialization skills». Mol. Psychiatry, 11: 488-494. Young, L. J.; Hammock, E. A. (2007). «On switches and knobs, microsatellites and monogamy». Trends. Genet., 23: 209-212.
DOI: 10.2436/20.1501.02.89
Cent cinquanta anys després de L’origen de les espècies, de Darwin (Arcadi Navarro i Carmen Segarra, ed.) Treballs de la SCB. Vol. 60 (2009) 245-253
DARWINISME I CREACIONISME Antonio Barbadilla Departament de Genètica i Microbiologia, Facultat de Biociències, Universitat Autònoma de Barcelona. Adreça per a la correspondència: Antonio Barbadilla. Departament de Genètica i Microbiologia, Facultat de Biociències, Universitat Autònoma de Barcelona. Campus de Bellaterra. 08193 Bellaterra. Adreça electrònica: antonio.barbadilla@uab.cat. RESUM A pesar de la resistència inicial al darwinisme, a principis del segle xx la idea de l’evolució de la vida era ja acceptada per la majoria de les confessions cristianes. No obstant això, en el sud i l’oest mitjà dels EUA, nombrosos grups de cristians evangèlics molt actius han intentat repetidament prohibir l’ensenyament de l’evolució a les escoles o compartir-lo en temps i reconeixement científic amb el relat bíblic del Gènesi. En temps recents, els creacionistes s’han renovat i organitzat a través del moviment del disseny intel·ligent, i han guanyat adeptes d’altres confessions. La persistència, cent cinquanta anys després de L’origen, de creences obertament anticientífiques, és una gran paradoxa del nostre temps. La universalització de la pràctica de la ciència no s’ha traduït en l’adopció d’una cosmovisió comuna de l’Univers i la vida. Paraules clau: evolució, darwinisme, creacionisme, disseny intel·ligent, naturalisme. DARWINISM AND CREATIONISM SUMMARY Despite the initial resistance to Darwinism, at the beginning of the 20th century the view of the evolution of life was widely accepted for most of Christian confessions. However, in the South and Middle West of the United States, independent groups formed by very active evangelic Christians are reiteratively attempted to make illegal the teaching of Darwinian evolution in public schools. Likewise, they have struggled to share equal time in the class rooms for the teaching of both Bible narration of creation and evolution. In recent times, creationists have been reorganized within the Intelligent Design movement. They have gained adepts from other confessions. The persistence, 150 years after the Ori-
246 A. Barbadilla
gin, of views such openly antiscientific is a great paradox. The universalization of the praxis of science has not been translated to a common cosmovision of the Universe and life. Key words: evolution, darwinism, creationism, intelligent design, naturalism. INTRODUCCIÓ La incorporació del pensament i la metodologia de la ciència a la majoria de les activitats humanes és responsable dels grans avenços científics i tecnològics que la humanitat ha experimentat durant els últims segles. En contrast, i a pesar dels cent cinquanta anys des de l’aparició de L’origen de les espècies (Darwin, 1859), resulta paradoxal que existeixi encara un percentatge molt significatiu de persones que manté una visió antidarwinista sobre l’origen de la vida i de les espècies. Una enquesta de l’Institut Gallup de 2004 recull que el 42 % dels nordamericans creu que la humanitat va ser creada directament per Déu, un 18 % creuen en una evolució dirigida per Déu i només un 26 % es declara darwinista. A la Gran Bretanya, en un sondeig de la BBC a dues mil persones, el 52 % dels enquestats deia creure en explicacions no darwinistes de l’origen de la vida i l’evolució. En un sondeig més recent en trenta-quatre països (els EUA, el Japó i trenta-dos d’europeus) que va aparèixer a la revista Science (Miler et al. 2006), es va preguntar als enquestats si «els éssers humans descendeixen d’espècies animals més antigues». Els turcs i nord-americans van ser els primers i segons per la cua a acceptar l’evolució, amb un percentatge del 24 i el 40 %, respectivament. Islàndia, amb el 85 % de respostes afirmatives, va registrar el percentatge més elevat d’evolucionistes. Espanya se situava, amb un 70 %, en el lloc novè dels països amb major acceptació de l’evolucionisme. A pesar de les diferències substancials entre països, aquestes dades indiquen que a la revolució darwinista encara li queda encara un llarg camí
per recórrer per arribar a ser un element fonamental de la cosmovisió de qualsevol persona. En aquest article es tractarà el debat creacionisme-darwinisme, però també es considerarà la relació, més general i de major interès, entre religió i evolució. Actualment, gràcies al darwinisme, es presenten noves perspectives de síntesi. LES IMPLICACIONS DEL DARWINISME L’origen de les espècies donà el cop de gràcia a la participació del Creador en la història de la vida. En la seva obra Teologia natural, publicada el 1802, el teòleg W. Paley exposa el seu famós argument del rellotger, del qual es conclou que el disseny funcional dels organismes provava l’existència d’un creador omniscient. La teologia natural es considerava la resposta a les preguntes relatives a la gènesi i a les adaptacions dels organismes, i la majoria dels naturalistes del temps de Darwin l’acceptava com a explicació a la complexitat de les estructures dels organismes. Darwin, amb L’origen, inaugura la cosmovisió naturalista de la biologia. La selecció natural de Darwin introdueix en escena el «rellotger cec» (Dawkins, 1986) que, com en la mecànica celeste de Laplace, fa innecessària la hipòtesi de Déu. L’evolució de la vida, igual com la revolució copernicana havia demostrat per a l’Univers, no se subsumeix al designi de Déu. Els fenòmens naturals s’esclareixen a partir de les lleis i processos que es donen en la naturalesa. El procés de selecció natural permet explicar el caràcter teleonòmic dels organismes biològics, sense la necessitat de postu-
Darwinisme i creacionisme 247
lar una intervenció sobrenatural. El pensament poblacional, l’especiació, la selecció natural, són conceptes i processos naturals que permeten explicar l’origen, diversificació i adaptació dels éssers vius. Les conseqüències teològiques de l’evolucionisme darwinista són encara majors que les de l’heliocentrisme de Copèrnic, Galileu i Kepler. Darwin refuta la creació de la vida, la joventut de la Terra, la teleologia còsmica i l’antropocentrisme (Mayr, 1988). No podia esperar-se res més que un rebuig inicial de les idees de Darwin. Primer per part dels naturalistes fixistes, però principalment dels teòlegs i ministres de l’Església. De les moltes desqualificacions, insults i caricatures burletes (vegeu la figura 1) de la teoria evolutiva, és ben coneguda la de l’enfrontament entre el bisbe d’Oxford, Samuel Wilberforce, conegut per la seva oratòria persuasiva i relliscosa com Sam el sabonós, i Thomas H. Huxley, amic de Darwin i defensor de la teoria evolucionista. La resposta contundent de Huxley a la pregunta insidiosa de Wilberforce sobre si el seu avantpassat mico provenia del costat patern o el matern és avui una de les anècdotes preferides del relat de l’acollida inicial al darwinisme. Coincidint amb els preparatius de l’any 2009, l’any de Darwin, l’Església anglicana va demanar el 15 de setembre de 2008 disculpes a Darwin per haver-se oposat de «manera excessivament emocional» a la seva teoria de l’evolució. Afortunadament, les idees de Darwin no van aparèixer durant el segle xvi. La il· lustració i les idees de canvi imperants en la societat britànica i europea de la segona meitat del segle xix permetrien que l’evolució de la vida fos acceptada en relativament poc temps, fins al punt de convertirse en la gran revolució cultural de la seva època. Distinta sort va tenir la selecció natural, que va haver d’esperar fins a la segona dècada del segle xx perquè fos accepta-
da plenament per la comunitat científica. La prova del reconeixement que Darwin va tenir en vida és que fos enterrat a l’abadia de Westminster com un dels científics més importants de tots els temps. Els creacionistes i darwinistes escèptics van considerar
Figura 1. a) Després de la publicació de La descendència de l’home el 1871, Charles Darwin va ser caricaturitzat freqüentment com un mico. b) A Espanya, els germans Bosch, propietaris d’una destil·leria, es creu que estaven en contra de la teoria de l’evolució, i van caricaturitzar Darwin en l’etiqueta d’Anís del mono.
248 A. Barbadilla
al·legòrics els primers capítols del Gènesi, i van acceptar una antiguitat major de la Terra, ja que els sis dies de creació no eren necessàriament de vint-i-quatre hores. Les confessions cristianes van adaptar gradualment una concepció teista de l’evolució, en què Déu intervenia en la creació de l’home. El problema del moment de l’adquisició de l’ànima en l’evolució humana no era, al cap i a la fi, distint al que es planteja respecte al moment en el qual l’obté un fetus humà en desenvolupament. Alguns teòlegs no solament acceptaren l’evolucionisme com a mitjà emprat per Déu per a la creació, sinó que l’utilitzaren com a trampolí envers una visió teleològica de major transcendència i contingut poètic que el creacionisme. El jesuïta francès Theilard de Chardin (18811955) proposà una versió mística de l’evolució, segons la qual tota la matèria, orgànica i inorgànica, evoluciona intrínsecament en un sentit direccional, ascendent, cap a una meta final, el punt Omega, un lloc de trobada de consciències en perfecta harmonia espiritual. Versions teistes de l’evolució com la de Chardin poden explicar que l’oposició de l’Església catòlica a l’evolucionisme fos menor que la d’altres confessions. El 1950, el papa Pius XII declarà en l’encíclica Humani generis que no hi ha oposició entre l’evolucionisme i la doctrina catòlica, a pesar de mostrar reserves sobre la «hipòtesi evolucionista». El 23 d’octubre de 1996 Joan Pau II va reconèixer que el pes de l’evidència científica fa que la teoria de l’evolució sigui «més que una hipòtesi». No obstant això, més recentment, el 2006, i reflectint potser l’auge del pensament conservador dels últims anys, el papa Benet XVI va declarar en una catequesi a Ratisbona que una part dels científics s’obstina a demostrar que Déu és «inútil» per a l’home, i afirma que la teoria de l’evolució és «irracional», que l’ateisme modern neix de la por a Déu i que l’odi i el fanatisme destrueixen la imatge de Déu.
EL FONAMENTALISME NORD-AMERICÀ La controvèrsia evolucionisme-creacionisme ha estat molt més llarga i intensa a Amèrica del Nord. El 1900 l’ensenyament de l’evolució es va anar introduint gradualment a través dels llibres de text dels instituts públics. En les regions rurals del sud i de l’oest mitjà dels EUA, nombrosos grups de cristians protestants, presbiterians, baptistes, episcopals i altres, creien (i encara creuen) en la literalitat de la Bíblia. Si el Gènesi diu que Déu va crear el món en sis dies, llavors la creació hagué de succeir en sis dies seguits, de vint-i-quatre hores cadascun. Aquests cristians fonamentalistes s’oposaven fermament a l’ensenyament de la teoria de l’evolució, que creien que conduïa a la immoralitat, l’ateisme, l’agnosticisme, el socialisme, el feixisme, i moltes altres idees falses i perilloses. En la dècada dels vint, en el període entre les guerres mundials, el fonamentalisme bíblic es va expandir, especialment entre els adventistes del setè dia, les creences dels quals es fonamentaven en els set dies de la creació, i entre els pentecostals. El 1924 es prohibeix a l’estat de Tennessee ensenyar en les escoles qualsevol teoria que negués la creació divina tal com es descriu a la Bíblia. El 1925 té lloc en aquest estat el famós «judici del mico»: el professor de biologia John Scopes va ser jutjat i condemnat a una multa de cent dòlars per ensenyar el darwinisme a l’escola, multa que dos anys després li va ser condonada. A pesar de la victòria dels fonamentalistes en el judici, les seves idees van ser ridiculitzades públicament, i per això el judici a Scopes va significar una reculada del moviment creacionista (per a una narració més completa del moviment creacionista vegeu Alemañ, 2007 i Ayala, 2007).
Darwinisme i creacionisme 249
Neocreacionisme: el creacionisme científic En la dècada dels seixanta, tal com l’evolució adquiria un paper més central en la biologia, les esglésies fonamentalistes es van organitzar per difondre missatges creacionistes en les seves universitats, escoles i mitjans de comunicació. En veure que no aconseguien abolir legalment l’ensenyament de l’evolució de les escoles, els creacionistes intentaren aconseguir que es promulguessin lleis per dedicar el mateix temps a l’ensenyament de la teoria evolutiva que a la creació segons el relat bíblic del Gènesi. El 1961 es publicà el primer llibre modern del creacionisme, El diluvi del Gènesi, de Henry M. Morris i John C. Whitcomb, en què es defensa, entre altres idees, que la creació va ser de sis dies de durada, que els humans van viure amb els dinosaures i que Déu va crear independentment cadascun dels llinatges avui existents. Morris va fundar a San Diego (Califòrnia) el Centre de Recerca de la Ciència de la Creació (CRSC) i l’Institut per a la Investigació Creacionista (ICR), que publicaven llibres de text de biologia que promovien el creacionisme. Morris i altres partidaris van adoptar el terme creacionisme científic o ciència de la creació. La constitució nord-americana consagra la neutralitat de l’estat en l’educació religiosa, per la qual cosa la doctrina creacionista només podia accedir a les aules presentant-se com una teoria científica. La tàctica dels creacionistes consistia a atacar els fonaments de l’evolució mitjançant una sèrie de publicacions que pretenien demostrar que els elements essencials de la teoria evolutiva eren falsos. La seva alternativa era «la ciència de la creació», que consisteix en l’acceptació literal, fil per randa, de la creació segons es relata en els dos primers capítols del llibre del Gènesi de les Sagrades Escriptures. La presentació rigorosa i formal dels
primers llibres creacionistes va fer que alguns estats concedissin temps iguals dedicats a l’ensenyament del «creacionisme científic» i de l’evolucionisme. El febrer de 1981 es va aprovar una llei per a l’ensenyament a temps iguals a Arkansas. En els diversos plets que es van interposar contra aquesta llei van atestar prestigiosos científics, entre ells Stephen Jay Gould i Francisco Ayala, a favor de l’evolució com a fet completament establert i van negar un estatus científic a l’autodenominada «ciència de la creació». Com Gould va assenyalar (1987), l’expressió ciència de la creació és un oxímoron, una frase contradictòria i sense sentit. El veredicte del tribunal va considerar inconstitucional la llei del tractament a temps iguals, ja que, en no ser un coneixement científic, s’estava adoctrinant els alumnes en una creença religiosa específica, en contra de la primera clàusula fundacional de la constitució americana. A Louisiana i Nou Mèxic es van presentar casos similars. El 1968, l’Associació Internacional dels Estudiants de la Bíblia, formada pels testimonis cristians de Jehovà, va publicar un dels llibres creacionistes i antievolucionistes més àmpliament difós, Va arribar a existir l’home per evolució o per creació? (International Bible Students Association, 1968). Es van arribar a distribuir catorze milions de còpies per tot el món, en tretze idiomes distints. Probablement va ser també el llibre creacionista de major circulació a Espanya. A més de defensar la interpretació literal del Gènesi bíblic, el llibre tracta de desacreditar la teoria de l’evolució emprant la retòrica persuasiva i eficaç dels textos creacionistes: se citen científics fora de context, s’interpreten malament, s’empren suposicions i prejudicis quotidians, s’efectuen generalitzacions injustificades i s’exposen visions simplistes o inexactes de la teoria evolutiva. Per exemple, un recurs explotat una vegada i una altra és fer creure que els
250 A. Barbadilla
científics diuen que les adaptacions sorgeixen per casualitat, que la selecció natural és un procés exclusivament atzarós. O s’afirma que és impossible que puguin sorgir estructures complexes a partir d’unes de més simples per evolució, perquè això violaria la segona llei de la termodinàmica. Un altre recurs molt emprat és el que Dawkins (2007) denomina «Déu tapaforats»: quan hi ha alguna cosa que la ciència no pot explicar, s’atribueix a Déu. Les diferents confessions creacionistes són molt eficaces a l’hora d’expandir la seva doctrina per tot el món gràcies principalment a l’activisme del tots dels seus membres i a la utilització de les tècniques més avançades de difusió: publicacions de llibre d’autoria anònima, predicació casa per casa, telepredicació, Internet i altres formats multimèdia. El disseny intel·ligent L’última i més sofisticada estratègia dels neocreacionistes és el moviment del disseny intel·ligent. A diferència de les tàctiques fracassades del seu predecessors literalistes, el disseny intel·ligent busca formular una teoria científica que s’ajusti als estàndards científics, per poder competir així amb l’evolucionisme en condicions d’igualtat. Exposada per titulats universitaris, amb un llenguatge refinat, admetent obertament les seves conviccions, i fins i tot acceptant un marc evolutiu («evolució sí, però per designi diví, no per selecció natural»), aquesta renovada versió del creacionisme té una imatge més atractiva i moderna, fet que li ha permès guanyar ràpidament adeptes en altres confessions, com el catolicisme. Però també ha estat determinant per a la seva ràpida expansió el finançament per part de patrocinadors milionaris de pensament ultraconservador. L’Institut Discovery, amb seus a Seattle i a la Universitat de San Die-
go, reuneix els pensadors creacionistes i difon la doctrina del disseny intel·ligent mitjançant la publicació de llibres i articles en editorials especialitzades en apologètica cristiana, revistes i portals d’Internet propis. Philip Johnson, professor de dret a Berkeley, és considerat el fundador del moviment. El 1991, Johnson publicà Darwin a examen, un llibre de gran èxit en el qual es critica el mètode científic «secular» perquè s’absté per principi d’apel·lar a poders sobrenaturals en les explicacions científiques. El secularisme, afirma, és el principal error de la ciència, i hauria de substituir-se per una ciència teista que incorpori Déu en la seva imatge del món. L’acompanyen altres autors, com el bioquímic Michael Behe, autor del llibre La caixa negra de Darwin (Behe, 1999) o el professor de filosofia i teologia Williams Dembski. Dos dels arguments «científics» del disseny intel·ligent són el de l’Univers finament ajustat (fine-tuned Universe) i el de la complexitat irreductible. L’argument de l’Univers finament ajustat sosté que l’Univers posseeix una sèrie de característiques físiques que fan possible la vida. Aquestes característiques, segons els autors, no podrien explicar-se per atzar, i per això només poden atribuir-se a la presència d’un dissenyador intel·ligent que proveeix les condicions necessàries perquè la vida tingui lloc. Aquest argument està íntimament relacionat amb el denominat principi antròpic fort, que sosté que la vida intel·ligent és una conseqüència forçosa de l’evolució de l’Univers (Hortolà i Carbonell, 2007). L’argument de la complexitat irreductible sosté que en la naturalesa existeixen estructures complexes que són irreductibles en el sentit que no podrien haver sorgit per evolució biològica a partir d’estructures més simples, ja que l’eliminació de qualsevol de les parts fa que el sistema deixi de ser funcional. Com a exemples de complexitat ir-
Darwinisme i creacionisme 251
reductible se citen mecanismes biològics com els agregats macromoleculars funcionals dels flagels bacterians i els cilis, o el mecanisme adaptatiu del sistema immunitari (Behe, 1999). Com que aquestes estructures no poden ser creades per la selecció natural, els autors conclouen que han estat dissenyades per un «dissenyador universal intel·ligent». El missatge final dels defensors del disseny intel·ligent és que la complexitat del món natural només pot explicar-se per l’existència d’una intel·ligència superior. I aquesta conclusió no inferida mostra la motivació última dels autors: demostrar l’existència de Déu. Tots dos arguments del disseny intel·ligent són reconeixibles en formulacions anteriors d’altres autors creacionistes. L’argument de la complexitat irreductible ens recorda l’argument del rellotger de Paley, que Darwin ja va abordar en parlar de la complexitat dels òrgans de complexitat extrema com l’ull en el capítol sisè de L’origen, en el qual tracta de les dificultats de la seva teoria. Dawkins (1986) explica, a partir d’exemples ben documentats, com poden evolucionar òrgans de complexitat extrema per selecció natural. Contràriament al que defensa Behe, treballs recents publicats en revistes científiques mostren com va poder evolucionar tant el sistema immunitari com els flagels bacterians, en ambdós casos a partir de proteïnes precursores que tenien altres funcions (vegeu Aya la 2007). L’argument de l’Univers finament ajustat es troba ja expressat en la cinquena via de Sant Tomàs d’Aquino, que parla de l’ordre del món. Però com indica Ayala (2007), aquesta no és una qüestió científica, ja que la idea que Déu va crear el món ex nihilo, a partir del no-res, no nega ni afirma l’evolució de la vida. L’octubre de 2004, els creacionistes de Pennsilvània, incentivats per aquest nou moviment, intenten que el disseny intel·
ligent s’ensenyi en les escoles al costat de la teoria de l’evolució biològica. El plet del districte de Denver (Pennsilvània), a la fi de 2005, es conclou amb una sentència que proscriu l’ensenyament del disseny intel· ligent. La mateixa iniciativa s’ha portat a terme a Kansas, Mississipí, Arkansas, Minnesota, Nou Mèxic i Ohio. El consell educatiu de Kansas va aprovar l’obligatorietat que els professors de ciències cridessin l’atenció dels seus alumnes sobre els dubtes raonables que existeixen sobre l’evolució darwinista. Com ja va fer Reagan prèviament amb el creacionisme científic, George W. Bush es va sumar a la polèmica, i va avalar l’ensenyament d’ambdues teories en condicions d’igualtat en les classes de ciències. Els arguments del disseny intel·ligent han tingut un gran eco mediàtic, especialment als EUA, però també a Europa. En l’enquesta de la població britànica citada al principi d’aquest article, un 41 % dels britànics desitjaria incloure el disseny intel·ligent en el sistema educatiu. La comunitat científica s’ha vist obligada a rebatre els arguments en premsa, ràdio i televisió. Recentment, l’Acadèmia Nacional de les Ciències d’Amèrica, juntament amb l’Institut de Medicina, han publicat un llibre divulgatiu, Science, evolution and creacionism (2008), en el qual adverteixen que el disseny «intel·ligent» és una forma de creacionisme basada en l’opinió que els éssers vius són massa complexos per haver evolucionat per mecanismes naturals. Aclareixen que és una perspectiva creacionista, no científica, i que per això no ha provocat cap debat en la comunitat científica. Entre els evolucionistes darwinistes i els creients fonamentalistes existeix una animadversió anàloga a la que hi ha entre persones de creences polítiques oposades. Es desenvolupa una immunitat envers les idees de l’altre, i un és refractari al seu missatge
252 A. Barbadilla
perquè es crea una actitud mental de «ja sé què vols» que, com un cinturó de seguretat ideològic, permet ignorar els arguments de l’altre. No hi ha cap activitat més infructuosa que argumentar amb un testimoni de Jehovà invocant més i més proves científiques a favor de l’evolució. Els termes de la discussió no són sobre fòssils intermedis o divergència en les seqüències de DNA. Els termes són sobre les fonts de la creença, sobre raó i fe, sobre triar entre revelació o raó científica com a principi de coneixement i veritat. La qüestió és essencialment filosòfica, no empírica. PER QUÈ PERSISTEIX EL CREACIONISME? A dia d’avui, el debat creacionisme-darwinisme és científicament estèril. Els arguments adduïts pels creacionistes, a pesar dels seus canvis d’aparença, són els de sempre i han estat rebatuts una vegada i una altra; estan mancats d’interès, tant científic com filosòfic. Els fonamentalistes donen un valor suprem a un text escrit fa més de dos mil cinc-cents anys en un context històric i cultural que res té a veure amb l’actual, i encara així el consideren més creïble que tot el cos de coneixements, dades empíriques i estructures teòriques que milers de ments dotades de la nostra espècie han desenvolupat treballant en col·laboració durant els últims cent cinquanta anys. El creacionisme no té cap possibilitat d’imposar la seva visió, excepte en el cas que es produeixi el col·lapse de la civilització i es restauri un ordre medieval. No obstant això, i per aquesta mateixa debilitat dels seus arguments, resulta paradoxal i intrigant la persistència d’aquest debat: per què avui, cent cinquanta anys després de L’origen, continua havent-hi tanta gent que nega la raó científica de l’evolució darwinista? Sens dub-
te, una causa pròxima és el fervor religiós i l’activisme dels membres d’aquests grups creacionistes, que no dubten a posar tots els recursos al seu abast, que en tenen, per defensar i intentar imposar les seves creences. Es podria pensar que el creacionisme és exclusivament un problema americà. En l’estudi de Miller et al. (2006) citat els autors atribueixen les diferències en la creença en l’evolució d’ambdós costats de l’Atlàntic al pes del fonamentalisme evangelista, a la incorporació en el debat polític de la disputa creacionista-evolucionista, i a la profunda incultura científica d’amplíssimes capes de la població nord-americana. Però encara que a Amèrica del Nord és on més fonamentalistes hi ha, i on més soroll han fet, el creacionisme té un abast mundial. El judaisme ultraconservador i l’islamisme fonamentalista també participen del mateix rebuig a tot l’evolucionisme. Com diu Ayala (2007), «durant els últims anys l’expansió del fonamentalisme musulmà fervent s’està convertint en una força important contra l’estudi i l’ensenyament de l’evolució en els països predominantment musulmans del nord d’Àfrica i de l’Orient Pròxim». A l’Aràbia Saudita i el Sudan està prohibit l’ensenyament de l’evolució a les escoles, i en països com Turquia es promou activament el creacionisme científic. Els europeus també han vist com aquests debats, que creien propis d’Amèrica del Nord, tenien ara lloc també en el seu sòl, especialment a Alemanya, Gran Bretanya, Itàlia, Polònia i Holanda. És un problema d’analfabetisme científic? Brunfiel (2005) mostra que la proporció d’adults nord-americans que són partidaris de la biologia evolutiva es correlaciona amb el nivell d’estudis: el 65 % en els que posseeixen estudis de doctorat, el 52 % en els titulats universitaris, i un 20 % en els que arriben a un nivell igual o inferior a l’en-
Darwinisme i creacionisme 253
senyament secundari. Sens dubte, aquestes dades indiquen que una part important de la variació dins de l’espectre de creences que va del creacionisme a l’evolucionisme darwinista es deu al nivell de formació. Però encara així, que un 48 % de titulats universitaris no cregui en l’evolució darwinista continua sent un valor molt elevat. Els evolucionistes darwinistes hem de ser capaços de mirar amb sentit crític aquestes dades. Per què continua havent-hi tants creacionistes? La seva ferma oposició a l’evolucionisme, la persistència i força de les seves conviccions potser ens estan indicant que el darwinisme no és capaç de satisfer necessitats psicològiques que sí que omple el sentiment religiós (Wilson, 1995). Això potser explicaria també per què hi ha, a més, un percentatge tan alt de persones que creu que l’evolució està dirigida per Déu. No pretenc afirmar, com fa Ayala (2007), que el cristianisme sigui compatible amb l’evolucionisme, perquè la religió i la ciència abasten magisteris distints. Igual que Dawkins (2006), no crec que l’evolucionisme darwinista sigui més compatible amb el cristianisme que amb la mitologia grega. El que vull indicar és que el darwinisme, tal com es formula actualment, no té l’atractiu suficient perquè sigui acceptat en la seva totalitat. Si el fenomen religiós és, com molts evolucionistes creuen (Graffin i Provine, 2008), un tret sociobiològic de l’evolució humana, llavors aquell és conseqüència, i no causa, d’aquesta. Una cosmovisió naturalista que satisfaci les necessitats de la naturalesa humana hauria, per tant, de poder harmonitzar la raó i l’emoció religiosa. Com diu Mosterín (2006), «la ciència sense mística corre el risc de quedar-se en mera gimnàstica mental, la mística sense ciència fàcilment degenera en autoengany i superstició; solament la sucosa conjunció del coneixement científic amb el sentiment místic ens per-
met aspirar a arribar a aquell estat d’exaltació lúcida i plenitud vital que consisteix la comunió amb l’Univers». La consecució d’un credo universal de base darwinista ens portaria a un plànol superior de consciència de l’espècie humana; sens dubte, el llegat més important que ens podria haver deixat Darwin. BIBLIOGRAFIA Alemañ, R. (2007). Evolución o diseño ¿un dilema? Madrid: Equipo Sirius. Ayala, F. J. (2007). Darwin y el diseño inteligente. Creacio nismo, cristianismo y evolucionismo. Madrid: Alian za. Behe, M. J. (1999). La caja negra de Darwin. El reto de la bioquímica a la evolución. Barcelona: Andrés Bello. Brunfiel, G. (2005). «Who has designs on your student’ minds?» Nature, 434: 1062-1065. Darwin, C. (1859). El origen de las especies. Madrid: Edaf. Dawkins, R. (1986). El relojero ciego. Ed. Labor, 1989. — (2006). El espejismo de Dios. Madrid: Espasa-Calpe. Gould, S. J. (1987). «Creation science is an oxymoron». Skeptical Inquirer, 11: 2. Graffin, G. W.; Provine, W. B. (2008). «Evolución, religión y libre albedrío». Investigación y ciencia (febrer): 80-84. Hortolà, P.; Carbonell, E. (2007). «Creación versus evolución: del origen de las especies al diseño inteligente». Asclepio. Revista de Historia de la Medicina y de la Ciencia, 59: 261-274. Mayr, E. (1988). Towards a new philosophy of biology. Harvard: Harvard University Press. Miller, J. D.; Scott, E. C.; Okamoto, S. (2006). «Science communication: public acceptance of evolution». Science, 11: 765-766. Mosterín, J. (2005). La naturaleza humana. Madrid: Espasa-Calpe. National Academy of Sciences and Institure of Medicine (2008). Science, evolution and creationism. Washington: The National Academies Press. International Bible Students Association (1968). ¿Llegó a existir el hombre por evolución o por creación? Nova York: International Bible Students Association. Wilson, E. O. (1995). El naturalista. Madrid: Debate. Whitcomb, J. C.; Morris, H. M. (1961). El diluvio del Génesis: el relato bíblico y sus implicaciones científicas. Madrid: Clie.
ÍNDEX D’AUTORS Aguadé, M. . . . . . . . . . . . . . . . . . . . . . . . . . 93 Armengol, L. . . . . . . . . . . . . . . . . . . . . . . . 57 Baguñà, J. . . . . . . . . . . . . . . . . . . . . . . . . . 103 Barbadilla, A. . . . . . . . . . . . . . . . . . . . . . 245 Bosch, E. . . . . . . . . . . . . . . . . . . . . . . . . . . 195 Calafell, F. . . . . . . . . . . . . . . . . . . . . . . . 195 Casals, F. . . . . . . . . . . . . . . . . . . . . . . . . . . 81 Comas, D. . . . . . . . . . . . . . . . . . . . . . . . . . 195 Fontdevila, A. . . . . . . . . . . . . . . . . . . . 7, 123 Gil, R. . . . . . . . . . . . . . . . . . . . . . . . . . . . . . 45
Lalueza-Fox, C. . . . . . . . . . . . . . . . . . . . . 205 Marquès-Bonet, T. . . . . . . . . . . . . . . . . . . 57 Navarro, A. . . . . . . . . . . . . . . . . . . . . . . . 231 Peretó, J. . . . . . . . . . . . . . . . . . . . . . . . . . . . 31 Pérez-Enciso, M. . . . . . . . . . . . . . . . . . . . 169 Petitpierre, E. . . . . . . . . . . . . . . . . . . . . . 151 Santos, M. . . . . . . . . . . . . . . . . . . . . . . . . 213 Serra, L. . . . . . . . . . . . . . . . . . . . . . . . . . . 181 Szathmáry, E. . . . . . . . . . . . . . . . . . . . . . . 213
SOCIETAT CATALANA DE BIOLOGIA Consell Directiu President Vicepresident 1r Vicepresidenta 2a Secretària general Vicesecretari Tresorera Vocal de lexicografia Vocal de sessions Vocal d’acció territorial Vocal de publicacions Vocal de comunicació Vocal d’ensenyament Vocal d’estudiants Delegat de l’IEC
Jaume Reventós i Puigjaner Ferran Azorín i Marín Lluís Tort i Bardolet Josep Clotet i Erra Arcadi Navarro i Cuartiellas Carme Segarra i Robert Ricard Roca i Pascual Àurea Navarro i Sabaté Jordi Bermúdez Francesc Piferrer i Circuns Hèctor Ruiz i Martín Rosa Pérez Joan Duran Ricard Guerrero i Moreno
SOCIETAT CATALANA DE BIOLOGIA Seccions especialitzades Aqüicultura Biofísica Biologia del desenvolupament Biologia evolutiva Biologia i indústria Biologia molecular Biologia molecular del càncer Biologia de la reproducció Biologia i societat Ecologia marina Ecologia terrestre Ensenyament Fisiologia vegetal Genòmica i proteòmica Microbiologia Neurobiologia experimental Senyalització cel·lular i metabolisme Virologia Estudiants SCB a Alacant SCB a les Balears SCB a Lleida SCB al Pallars SCB a València SCB a Vic
Lluís Tort Pere Garriga Jordi Garcia-Fernández Montserrat Papaceit Ramon Roca Maribel Geli Gabriel Capellà Francesca Vidal Cristina Junyent Ramon Masana Josep Maria Espelta Rosa Pérez Josep M. Torné Francesc Xavier Avilés Mercè Berlanga Josep Saura Francesc Vinyals Miguel À. Martínez i Ana Angulo Joan Duran Ivan Quesada Balbina Nogales M. Ángeles de la Torre Xavier Castells Helena Mira Jordi Planas
Interior 59 Soc Cat Bio
2/3/2009
14:19
Página 1
NORMES DE PUBLICACIÓ DE TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA Abast. Treballs de la Societat Catalana de Biologia (Treb. Soc. Cat. Biol.) publica: a) monografies i revisions sobre temes de ciències de la vida encarregades per la Societat, i b) comunicacions presentades a les sessions ordinàries i extraordinàries organitzades per la Societat o les seves seccions especialitzades. Els temes poden ser proposats pels membres del Consell Directiu o per socis que desitgin ocupar-se de la preparació d’un volum de la revista fent d’editors. El Consell Directiu decideix si un tema és apropiat per dedicar-hi un volum de Treb. Soc. Cat. Biol. Idioma. Els originals seran redactats en català, excepte en casos justificats per als quals el Consell Directiu pugui acceptar una altra llengua. Lliurament dels originals. La submissió implicarà que el material és original i que no ha estat enviat, acceptat o publicat en cap altre lloc. Els originals els lliurarà l’editor del volum per correu electrònic (scb@iecat.net), adreçat al president del Consell de Redacció. Cal enviar els següents arxius, preferentment empaquetats amb ZIP: — Un arxiu únic en format RTF o MS Word anomenat Text_TSCB_[cognom de l’editor], amb tot el text del volum, incloent-hi, en aquest ordre: coberta, índex, presentació, els capítols en l’ordre desitjat i les seves taules, si n’hi ha. Les pàgines hauran d’anar numerades consecutivament començant per la núm. 1, que serà la de la coberta. Tot el text serà escrit íntegrament amb Times New Roman de cos 12 amb interlineat d’1,5. L’arxiu amb el text no podrà contenir figures ni objectes incrustats. — Un arxiu per cada figura anomenat Figura_[número de figura]_[cognom del primer autor]. Les figures, si no contenen text (a part del peu), es poden remetre en qualsevol dels formats gràfics habituals (PNG, JPEG, TIFF); si contenen text, s’han d’enviar en un format que permeti editar-lo (EPS, PDF, Powerpoint). — Cal enviar també una còpia impresa electrònica en format PDF de tot el volum, anomenada TSCB_[cognom de l’editor], amb tot el contingut, incloent-hi les figures. Aquest arxiu es farà servir com a text imprès de referència durant el procés de tractament del text. Per aquest motiu, els autors i l’editor han de tenir cura personalment que en aquesta còpia hi hagi tot el contingut imprès correctament, incloent-hi sobretot els símbols o caràcters especials, equacions, etc. Cada article o, en un volum monogràfic, cada capítol, incloent-hi la bibliografia, taules i figures, hauria de tenir una extensió entre quinze i vint fulls DIN A4, escrits amb el tipus, mida i interlineat esmentats abans. Només es podrà ultrapassar aquest límit amb l’acord previ del Consell de Redacció de Treballs de la SCB. Els volums monogràfics haurien de contenir un mínim d’uns deu capítols. El Consell de Redacció consultarà especialistes, els quals recomanaran si un article pot publicar-se immediatament, necessita revisió, o bé és rebutjat. Els autors rebran notificació de la decisió. Si el treball requereix revisió, es facilitaran als autors els comentaris escrits dels especialistes que l’hagin revisat. Estructura dels originals. Els originals que no s’ajustin a aquestes instruccions seran retornats als autors perquè els modifiquin abans de la seva tramitació. Dintre de cada capítol o article se seguirà el següent ordre pel que fa als diferents components:
— Títol, escrit en majúscules i negreta. — Nom i primer cognom de l’autor. Si n’hi ha més d’un, els seus noms aniran separats amb una coma. L’autor per a la correspondència s’identificarà amb un asterisc posat al final del seu cognom. — Adreça postal completa de tots els autors. Telèfon, fax i correu electrònic de l’autor per a la correspondència — Resum en català, d’un màxim de dues-centes paraules. — Paraules clau en català, màxim de cinc. — Resum en anglès (que, òbviament, haurà d’ésser traducció fidel del resum en català i haurà d’anar precedit de la traducció del títol del manuscrit). — Paraules clau en anglès, màxim de cinc. — Text, que, si és una revisió, podrà estar dividit fins a dos nivells en els apartats (no numerats) que es creguin més oportuns. Si es tracta d’un article de recerca, el manuscrit haurà d’incloure Introducció, Materials i mètodes, Resultats i Discussió. No es podran fer servir notes a peu de pàgina ni text subratllat. — Agraïments, si escau. — Referències, segons el format indicat més endavant. — Taules. Portaran un títol descriptiu breu i aniran numerades correlativament amb números àrabs. Una taula per full. — Text de peus de figures. Il·lustracions. Les il·lustracions cal que siguin de bona qualitat i contrast, tenint en compte la possible reducció, ja que, a causa del format de la revista, un cop publicades poden ésser, com a màxim, de 14 cm d’ample per 19 cm d’alt. Totes les il·lustracions seran en blanc i negre, excepte en cas que el color sigui essencial per a comprendre’n el significat. Atès que la publicació de fotografies en color encareix molt el procés editorial, els autors que desitgin incloure alguna fotografia en color hauran de pagar les despeses extra. En cas que les taules o figures hagin estat publicades anteriorment, caldrà indicar-ne la procedència i, si escau, el copyright. Referències. Totes les referències, tant publicades com en premsa, citades al text, hauran d’ésser incloses a la llista de referències, ordenades alfabèticament. En el text s’indicaran els noms dels autors i l’any de publicació per ordre cronològic; en el cas que una referència tingui més de dos autors, se citarà el primer seguit d’et al. A continuació hi ha exemples de l’estil que s’ha de seguir per a citar articles, capítols o monografies. CODINA, C.; VILADOMAT, F.; BASTIDA, J.; LLABRÉS, J. M. (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. MELLADO, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: VICENTE, M.; RENART, J. Ingeniería genética. Madrid: CSIC, 21-30. WOLFFE, A. (1995). Chromatin structure and function. Londres: Academic Press. Proves d’impremta i extrets. De tots els originals acceptats, l’autor de correspondència en rebrà unes proves d’impremta per a corregir-les, i aquestes proves hauran d’ésser retornades, per correu urgent, a: Secretaria de la Societat Catalana de Biologia, c/ Maria Aurèlia Capmany, 14-16, 08001 Barcelona (tel. 933 248 584; fax 932 701 180; a/e: scb@iec.cat) dins el termini màxim d’una setmana. En les proves no podran ésser introduïdes correccions d’estil, i només hi seran admeses les de caràcter ortogràfic i tècnic. Un cop publicat l’article, es lliuraran a l’autor vint extrets sense càrrec.
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA INSTRUCTIONS FOR AUTHORS Scope. Treballs de la Societat Catalana de Biologia (Treb. Soc. Cat. Biol.) publishes: a) monographs and reviews on life sciences topics commissioned by the Society; and b) lectures presented at both ordinary and extraordinary sessions organized by the Society or their specialized sections. Submission of originals. Submission implies that the material is original and that has not been submitted, accepted or published elsewhere. Originals will be submitted by the editor of the volume to the following e-mail address scb@iecat.net addressed to the President of the Publications Board. The following files will be provided, preferably ZIP-compressed: — A single file in format RTS or MS Word named Text_TSCB_ [editor’s last name], containing all the text of the volume, including, in this order, the following parts: cover page, table of contents, presentation, the chapters in the order that they should appear and their corresponding tables. Pages should be consecutively numbered, staring with page 1, which will be the cover page. All text should be written in Times New Roman, pt 12 with 1.5 spaces between lines. The text file cannot contain figures and incrustated objects. — One file for each figure named Figure_[figure number]_ [last name of the first author]. Figures that do not contain text characters can be submitted in standard graphic format (PNG, JPEG, and TIFF); figures that do contain text have to be submitted in an editable format (EPS, PDF, Powerpoint). — A single PDF file named TSCB_[editor’s last name] containing all text plus all figures. Authors and the editor are responsible that in this file, all contents appear correctly printed, in particular special symbols and equations. Each article or, in a monograph, each chapter, including text plus references, tables and figures, should be between fifteen and twenty DIN A4 sheets long, written with the font type and spaces between lines specified above. The maximum length can be surpassed only with prior approval from the Treballs de la SCB Publications Board. Monographs should have a minimum of 10 chapters. The Publications Board will contact specialists who will recommend immediate publication, acceptance after modifications or rejection of the submitted originals. Authors will be notified in due course. If revision is required, authors will receive the corresponding written comments for modifications. Structure of manuscripts. Manuscripts that do not conform to these instructions will be returned to the authors for modifications before their processing. Each chapter or manuscript should have the following structure: — Title, written in capitals and bold case. — Name and last name of author. If there is more than one author, their names will be separated with commas. The corresponding author will be identified with an asterisk placed after their last name.
— Full postal address of all authors. Phone, fax and e-mail address of the corresponding author. — Abstract, maximum two hundred words. — Keywords, maximum five — Text of manuscript. In the case of review articles, a maximum of two (not numbered) subheadings will be accepted. In the case of research articles, the manuscript will include the following sections: Introduction, Materials and Methods, Results, Discussion. Footnotes or underlined text will not be accepted. — Acknowledgments, if appropriate — References (see format below) — Tables. They will be preceded with a brief, descriptive title and will be numbered with Arabian numerals. One table per page — Figure legends Figure. Figures should be of good quality and contrast, taking into account that they can be reduced in size, and that once published they can be at most 14 cm width x 19 cm height. All figures will be in black and white, unless the use of color is essential to understand their meaning. The authors will pay extra costs of publishing color figures. If tables or figures have been previously published elsewhere, the original source must be indicated and it will be the responsibility of authors to deal with possible copyrights. References. All references published and in press cited within the text will have to be included in the reference list arranged in alphabetical order by the last name of the first author. In the text, the name of the authors and the publication year should be used in chronological order. If there are more than two authors, only the name of the first author followed by «et al.» will be used. The following examples represent the appropriate manner in which to cite articles, book chapters and books, respectively. CODINA, C.; VILADOMAT, F.; BASTIDA, J.; LLABRÉS, J. M. (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l’obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., 40: 47-70. MELLADO, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: VICENTE, M.; RENART, J. Ingeniería genética. Madrid: CSIC, 21-30. WOLFFE, A. (1995). Chromatin structure and function. Londres: Academic Press. Galleyproofs and reprints. Once a manuscript has been accepted, the corresponding author will receive the galleyproofs. Galleyproofs will be returned by courier to: Secretaria de la Societat Catalana de Biologia, c/Maria Aurèlia Capmany, 1416, 08001 Barcelona (tel. +34-933 248 584; fax +34-932 701 180; e-mail: scb@iec.cat) within one week. Style corrections cannot be accepted in galleyproofs. Only typographic and technical corrections will be accepted. Once published, authors will receive 20 reprints free of charge.
12:18
Página 1
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA
VOLUM 60, 2009
ÍNDEX
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN Reconstruint Darwin, cent cinquanta anys després . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. FONTDEVILA A partir d’un inici tan simple. L’origen de la vida: un problema de química amb història . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. PERETÓ Cèl·lules mínimes: evolució i disseny . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. GIL Estructura del genoma . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . T. MARQUÈS-BONET I L. ARMENGOL Elements transposables, de l’excepció a la norma . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . F. CASALS Polimorfisme nucleotídic i canvis adaptatius recents . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. AGUADÉ Com gens tan semblants generen morfologies tan diverses? El paper clau de la genètica del desenvolupament i la genòmica comparada en la visió darwiniana de l’evolució . . . . . . . . . . . . . . . . . . . . . . . . . . . J. BAGUÑÀ L’espècie horitzontal . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. FONTDEVILA Evolució cromosòmica i de la mida genòmica en els animals . . . . . . . . . . . . . . . . . . . . . . . . . . . . E. PETITPIERRE Domesticació en animals i evolució . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. PÉREZ-ENCISO La microevolució en acció: marcadors genètics del canvi climàtic . . . . . . . . . . . . . . . . . . . . . . . . L. SERRA Complint una intuïció de Darwin: genètica humana i llengües . . . . . . . . . . . . . . . . . . . . . . . . . . . D. COMAS, E. BOSCH I F. CALAFELL Paleogenòmica . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . C. LALUEZA-FOX The evolution of cooperation . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. SANTOS I E. SZATHMÁRY Economia, gens i evolució. Una nova aproximació a l’estudi de l’hominització . . . . . . . . . . . . . A. NAVARRO Darwinisme i creacionisme . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . A. BARBADILLA
7 31 45 57
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN
03/03/09
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN VOLUM 60, 2009
81 93
103 123 151 169
FILIAL DE L’INSTITUT D’ESTUDIS CATALANS
181 195 205 213 231 245
TREB. SOC. CAT. BIOL., VOL. 60, 2009
Cub. 60 Soc Cat Bio
BARCELONA 2009
12:14
Página 1
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN
03/03/09
TREB. SOC. CAT. BIOL., VOL. 60, 2009
Sobrecob 60 Soc Cat Bio
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN ARCADI NAVARRO I CARMEN SEGARRA EDITORS
Il·lustració de la sobrecoberta Esquerra: Retrat de Charles Darwin (1809-1882).
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 60, 2009
Dreta: Portada de la primera edició (1859) del llibre On the origin of species by means of natural selection.
12:14
Página 1
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN
03/03/09
TREB. SOC. CAT. BIOL., VOL. 60, 2009
Sobrecob 60 Soc Cat Bio
CENT CINQUANTA ANYS DESPRÉS DE L’ORIGEN DE LES ESPÈCIES, DE DARWIN ARCADI NAVARRO I CARMEN SEGARRA EDITORS
Il·lustració de la sobrecoberta Esquerra: Retrat de Charles Darwin (1809-1882).
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 60, 2009
Dreta: Portada de la primera edició (1859) del llibre On the origin of species by means of natural selection.