Avances en poscosecha de brócoli
Novedades en investigación basadas en artículos publicados durante 2025
Alicia Namesny
SPE3 – Poscosecha.com
wwww.bibliotecahorticultura.com

Avances en poscosecha de brócoli
Novedades en investigación basadas en artículos publicados durante 2025
Alicia Namesny
SPE3 – Poscosecha.com
wwww.bibliotecahorticultura.com
Novedades en investigación basadas en artículos publicados durante 2025 Alicia Namesny info@poscosecha.com Poscosecha.com
Índice
1. Introducción 1
2. El tratamiento con arginina mejora la acumulación de carbohidratos antes de la cosecha en el brócoli y su comportamiento después de la cosecha 1
3. El tratamiento con arginina proporcionó un suministro energético estable al brócoli para prolongar su tiempo de almacenamiento..................................................................................... 2
4. Pulverización precosecha con L-fenilalanina, una técnica potencial para mejorar eficazmente la calidad en almacenamiento 2
5. Razones por las que el tratamiento con melatonina retrasa eficazmente el amarillamiento poscosecha del brócoli 3
6. Nitroprusiato de sodio para retrasar el amarilleamiento......................................................... 4
7. Mecanismo regulador del amarillamiento en el almacenamiento en frío poscosecha............ 5
8. Dinámica de pérdida de agua tras el corte del tallo durante la cosecha.................................. 5
9. Agua rica en hidrógeno para retrasar el amarillamiento poscosecha en el brócoli 7
10. Estrés oxidativo y muerte celular programada en células BY-2 7
11. Conservación a 2 °C y envasado en poliestireno expandido para preservar la calidad del brócoli ........................................................................................................................................... 8
12. Investigación sobre el retraso de la senescencia y el amarillamiento poscosecha inducido por LED.......................................................................................................................................... 8
13. Respuestas adaptativas para promover la retención sostenible de la calidad en el brócoli
14. Extractos de glucosinolatos, efectivos contra Botrytis cinerea en manzana 10
15. Extractos de residuos de brócoli para proteger el tomate cherry durante la cosecha......... 10
16. El extracto de tallo de brócoli actúa como agente natural contra el pardeamiento en melocotones mínimamente procesados..................................................................................... 11
17. H₂S mejora la calidad y mitiga la pérdida de nutrientes de los brotes de brócoli 11
Esta obra está bajo una licencia de Creative Commons ReconocimientoNoComercial-SinObraDerivada 4.0 Internacional (CC BY-NC-ND 4.0)
1. Introducción
En las últimas décadas el brócoli ha pasado a primeros puestos entre las crucíferas y las hortalizas; a ello han contribuido sus numerosas propiedades organolépticas y nutricionales, el interés de los consumidores por el bienestar, facilidad de uso, la existencia de variedades que extienden el calendario de producción de su época clásica en otoño / invierno a una mayor disponibilidad en primavera, campañas de información al consumidor, etc.
España es el gran proveedor europeo de esta hortaliza, con una producción anual de aproximadamente 600.000 toneladas. El consumo se multiplicó por 10 en la última década, ayudado por campañas de promoción como la de +Brócoli. El mercado de brócoli congelado y de cuarta gama (fresco, cortado y envasado) muestra una tendencia al alza debido a la comodidad que ofrecen al consumidor.
La Región de Murcia es la principal productora, generando casi la mitad del total nacional (aprox. 280.000 toneladas), seguida por la Ribera del Ebro y Extremadura, esta última con un fuerte crecimiento en superficie dedicada al cultivo.
Aproximadamente el 70% al 90% de la producción española se exporta, siendo el Reino Unido el mayor cliente; se realizan campañas de promoción, como es el caso de Alemania, para impulsar el consumo.
A continuación, avances en poscosecha en base a trabajos publicados durante 2025.
2. El tratamiento con arginina mejora la acumulación de carbohidratos antes de la cosecha en el brócoli y su comportamiento después de la cosecha
La acumulación de nutrientes antes de la cosecha y los procesos metabólicos relacionados desempeñan un papel crucial en la determinación de la calidad y la vida útil del brócoli, lo que a su vez influye en su frescura, valor nutricional y comercialización. Sin embargo, los mecanismos reguladores subyacentes a estos procesos aún no están claros.
El estudio de Xue et al. (2025a) investigó los efectos de la aplicación de 5 mM de arginina (ARG) en los ramilletes antes de la cosecha, cinco días antes de la misma, sobre la acumulación de nutrientes, el metabolismo de los pigmentos y el mantenimiento de la calidad después de la cosecha en las cabezas de brócoli.
La aplicación de ARG aumentó significativamente los niveles de clorofila, carotenoides y fructosa durante la etapa previa a la cosecha del brócoli.
Además, el análisis transcriptómico reveló que el tratamiento con ARG reguló positivamente de forma significativa la expresión de genes relacionados con la fotosíntesis, el metabolismo de los carbohidratos y la biosíntesis de pigmentos. En consecuencia, la prevención del daño oxidativo a la clorofila y los carotenoides mantiene la estabilidad de los fotosistemas (PSI y PSII), mejora la eficiencia fotosintética y retrasa el amarilleamiento poscosecha.
También aumentó la expresión de la sacarosa fosfato sintasa y la enzima ramificadora del 1,4α-glucano, facilitando así la acumulación de carbohidratos.
Avances en poscosecha de brócoli
Asimismo, la aplicación de arginina redujo la expresión de los genes de degradación de la celulosa, contribuyendo al mantenimiento de la estructura de la pared celular. Este estudio proporciona una base teórica para los mecanismos intrínsecos de conservación poscosecha y acumulación de nutrientes precosecha en el brócoli.
3. El tratamiento con arginina proporcionó un suministro energético estable al brócoli para prolongar su tiempo de almacenamiento
El estado energético desempeña un papel crucial en los procesos fisiológicos del brócoli, y la investigación de sus vías metabólicas de energía y carbohidratos poscosecha puede dilucidar los mecanismos subyacentes a la frescura y la acumulación de nutrientes. Para evaluar el impacto de la aplicación de arginina un día antes de la cosecha en los mecanismos metabólicos poscosecha del brócoli, Xue et al. (2025b) realizaron análisis transcriptómicos y metabolómicos.
Los resultados de ambos análisis indicaron que el tratamiento con arginina aumentó la expresión de los genes de síntesis de almidón (StSy, GPAT) y de sacarosa (SPS), además de facilitar la producción de glucosa y fructosa, asegurando así un suministro estable de sustratos para las vías glucolíticas (EMP) y la vía de las pentosas fosfato (PPP), esenciales para mantener la calidad del brócoli.
Asimismo, el tratamiento con arginina inhibió la degradación asociada a genes relacionados con la celulosa (β-glucosidasa, EG) y al ácido D-galacturónico, preservando así la integridad de la pared celular.
Además, mejoró el flujo a través de la vía de las pentosas fosfato (EMP) y la vía de las pentosas fosfato (PPP) mediante la regulación positiva de la expresión de genes relacionados (FBP1, DDPFK, FBA, GAPD, PGK, TK). Cuando se aplicó arginina, los niveles de expresión de los genes MDH aumentaron 3,5 veces dentro del ciclo del ácido tricarboxílico (TCA), lo que resultó en una rápida síntesis de ATP.
Junto con el aumento de la síntesis de proteínas durante la fosforilación oxidativa (OXPHOS), se promovió significativamente la generación de ATP, lo que conllevó una mejora general en el estado energético.
Los resultados experimentales demostraron que el brócoli tratado con arginina mantuvo niveles más altos de ATP, ADP y carga energética durante todo el período de almacenamiento. Por lo tanto, es evidente que la prolongación del tiempo de almacenamiento del brócoli mediante la aplicación de arginina puede atribuirse a lograr un suministro de energía continuo y estable.
4. Pulverización precosecha con L-fenilalanina, una técnica potencial para mejorar eficazmente la calidad en almacenamiento
El brócoli presenta una alta susceptibilidad al deterioro de la calidad durante el almacenamiento poscosecha. Estudios previos han demostrado que la pulverización precosecha con 2 mmol/L de L-fenilalanina (L-Phe) puede inhibir eficazmente la degradación de la clorofila del brócoli durante el almacenamiento, retrasando así el amarillamiento. Sin embargo, su efecto sobre la
homeostasis de las especies reactivas de oxígeno (ROS) y los mecanismos de defensa antioxidante correspondientes, así como la capacidad antioxidante, no se han dilucidado.
El estudio de Wang et al. (2025a) reveló que la pulverización precosecha con L-Phe aumentó significativamente los sólidos solubles totales (SST) y el contenido de proteína soluble en el brócoli durante el almacenamiento.
Cabe destacar que el tratamiento precosecha con L-Phe indujo concentraciones elevadas de peróxido de hidrógeno (H₂O₂) a la vez que redujo la acumulación de anión superóxido (O₂•⁻) en el brócoli.
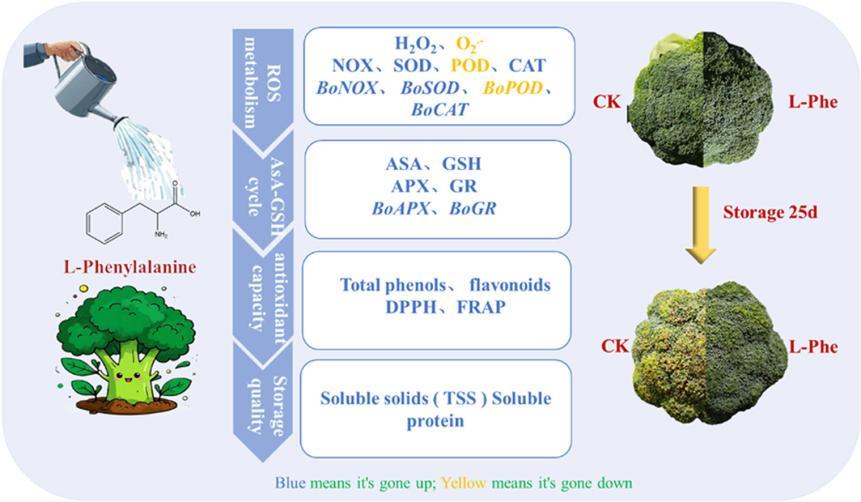
Figura 1 Resumen gráfico de Wang et al. (2025a) mostrando los efectos de la L-fenilalanina en el brócoli
Además, la aplicación de L-fenilalanina antes de la cosecha indujo un aumento significativo de enzimas antioxidantes clave en el brócoli, incluyendo las actividades de la NADPH oxidasa (NOX), la superóxido dismutasa (SOD), la catalasa (CAT), la ascorbato peroxidasa (APX) y la glutatión reductasa (GR), así como la peroxidasa reducida (POD). Esto se acompañó de una mayor expresión génica de BoNOX, BoSOD, BoCAT, BoAPX y BoGR, y una menor expresión de BoPOD.
Asimismo, aumentó significativamente la acumulación de compuestos antioxidantes clave, como el ácido ascórbico (AsA), el glutatión reducido (GSH), los fenoles totales y los flavonoides. El tratamiento también mejoró significativamente la actividad captadora de radicales libres DPPH y FRAP en el brócoli después de la cosecha. Estos resultados sugieren que la aplicación de L-fenilalanina (L-Phe) antes de la cosecha podría ser una técnica eficaz para mejorar la calidad de conservación poscosecha y la capacidad antioxidante del brócoli.
5. Razones por las que el tratamiento con melatonina retrasa eficazmente el amarillamiento poscosecha del brócoli
Para comprender mejor el efecto del tratamiento con melatonina (MT) en el retraso del amarillamiento poscosecha del brócoli mediante la regulación de la acumulación de especies reactivas de oxígeno (ROS), el estudio de Wang et al. (2025c) investigó los cambios en el sistema antioxidante y el módulo BoNAC52-BoRBOHF.
Avances en poscosecha de brócoli
Las cabezas de brócoli se trataron con una solución de MT de 200 μmol L−1 y se almacenaron a 25 °C durante 4 días.
Los resultados mostraron que el tratamiento con MT retrasó el amarillamiento, redujo los niveles de H2O2, O2·- y MDA, y mejoró la actividad del sistema antioxidante en el brócoli en comparación con el grupo control durante el almacenamiento. El análisis transcriptómico identificó el módulo BoNAC52-BoRBOHF como un regulador clave de los niveles de especies reactivas de oxígeno (ROS) durante la senescencia poscosecha. El tratamiento con MT aumentó la expresión de BoNAC52 y suprimió la expresión de cuatro BoRBOH, lo que se correlacionó con una disminución de los niveles de ROS en el brócoli durante el almacenamiento.
Investigaciones posteriores confirmaron que BoNAC52 se une directamente al promotor de BoRBOHF.
El papel regulador del módulo BoNAC52-BoRBOHF en la producción de ROS relacionada con la senescencia foliar se confirmó mediante el silenciamiento y la expresión transitoria de BoNAC52 en tabaco y pak choi.
Estos hallazgos demuestran que el tratamiento con MT retrasa la senescencia y el amarillamiento del brócoli durante el almacenamiento poscosecha al mejorar la capacidad antioxidante y activar el módulo BoNAC52-BoRBOHF para controlar la acumulación de ROS.
6. Nitroprusiato de sodio para retrasar el amarilleamiento
Zou et al. (2024) seleccionaron el nitroprusiato de sodio como tratamiento exógeno para evaluar su efecto en el proceso de amarilleamiento del brócoli. El tratamiento con 200 μmol/L de SNP (nitroprusiato de sodio) protegió la calidad aparente del brócoli, como lo demuestra el retraso en el aumento del índice de amarilleamiento, el valor L* y la disminución del valor –a/b.
También se observó que el tratamiento retrasó la disminución de los parámetros de fluorescencia de la clorofila Fv/Fm y Rfd, lo que refuerza la evidencia de que el SNP puede retrasar el proceso de amarilleamiento del brócoli. El mayor contenido de clorofila en el grupo tratado, en comparación con el grupo control, se debió a que el tratamiento con SNP limitó el aumento de la actividad de las enzimas degradadoras de clorofila: feofórbida a oxigenasa, colorante no amarillo 1, feofitinasa y clorofilasa.
Esta hipótesis se vio respaldada por la supresión de la sobreexpresión de genes relacionados con el catabolismo de la clorofila tras el tratamiento con SNP.
Además, el tratamiento con SNP exógeno inhibió la síntesis endógena de etileno durante el periodo de almacenamiento, lo que se manifestó principalmente por la disminución de la expresión de los genes de síntesis de etileno BoACO3, BoACO4 y BoACS2, y la inhibición de la actividad de las enzimas 1-aminociclopropanocarboxilato sintasa y 1aminociclopropanocarboxilato oxidasa, controlando así la liberación de etileno durante dicho periodo.
Los resultados anteriores proporcionan datos que respaldan la comercialización del SNP como conservante.
7. Mecanismo regulador del amarillamiento en el almacenamiento en frío poscosecha
Zhu et al. (2025) estudiaron los cambios en los niveles de proteínas y la fosforilación de proteínas que ocurren simultáneamente con el amarillamiento del brócoli mediante el método 4D-Label.
Mediante un análisis conjunto, se centró la atención en seis vías metabólicas enriquecidas con KEGG asociadas a proteínas (donde no se observaron diferencias proteicas, pero sí cambios significativos en la fosforilación), a saber: procesamiento de proteínas en el retículo endoplasmático y vía de vigilancia del ARNm, transporte nucleocitoplasmático, espliceosoma, transducción de señales de hormonas vegetales y vía de señalización MAPK en plantas. Entre ellas, las quinasas de proteínas relacionadas con SNF1 (SnRK2) y el factor de transcripción ABF, la proteína 2 insensible al etileno (EIN2), la proteína 1 resistente al jasmonato e insensible al JA (JAR1), la quinasa de señalización de brasinoesteroides (BSK), la proteína quinasa 6 similar a la proteína quinasa activada por mitógenos (MAPK6), la proteína quinasa de serina/treonina similar al receptor S de lectina de tipo G (GsSRK), la quinasa similar al receptor 1, la calreticulina, los transcritos sin sentido UPF2, el factor de empalme rico en serina/arginina SR45 y el inductor de condensación de cromatina apoptótica en el núcleo (Acinus) pueden afectar indirectamente el amarillamiento del brócoli.
En la vía fotosintética de las proteínas antena, las proteínas de unión a la clorofila a/b han surgido como objetivos clave en el ámbito de los análisis ómicos múltiples. Estas proteínas, en sinergia con las enzimas metabolizadoras de clorofila, ejercieron una influencia combinada en el amarillamiento del brócoli. Simultáneamente, el brócoli tras la cosecha experimenta varios cambios notables.
La estructura de su pared celular se debilita, lo que reduce su capacidad de protección.
Mientras tanto, se potencia la respuesta de defensa, a la vez que se inhiben la replicación del ADN y la síntesis de ARNm.
Además, se ven obstaculizados los procesos de mutación sin sentido y la escisión de los transcritos degradados.
En conjunto, estas alteraciones aceleran el proceso de senescencia del brócoli y probablemente sean los factores causantes de su amarillamiento.
8. Dinámica de pérdida de agua tras el corte del tallo durante la cosecha
La lesión mecánica durante la cosecha de brócoli, causada por el corte del tallo, induce rápidamente la pérdida de agua y el deterioro del tejido en el sitio de incisión (CI), comprometiendo la calidad durante la etapa de autoadaptación poscosecha (EAS; 0-12 h).
Por primera vez, Abbas et al. (2026) emplearon análisis combinados de RMN de bajo campo (RMN-BF) y transcriptómica para investigar la mitigación de la pérdida de agua inducida por la lesión en el CI durante 0, 3, 6 y 12 h.
La RMN-BF reveló una marcada alteración de la dinámica del agua en 3 h, caracterizada por una reducción significativa del agua libre en el CI, mientras que el sitio interno (SI) no lesionado conservaba la hidratación.
El análisis transcriptómico identificó 4134 genes diferencialmente expresados (GDE) a las 3 h, una cantidad mayor que en puntos temporales posteriores. El análisis de componentes principales (ACP) confirmó además que las muestras del CI, particularmente a las 3 h, exhibieron un perfil transcripcional distinto. Para prevenir la pérdida de agua, las acuaporinas (NIP, TIP, PIP) se regularon negativamente de forma rápida, mientras que las vías de biosíntesis de ácidos grasos, cutina, cera y suberina (ALDH, KCS, CYP, etc.) se indujeron fuertemente.
El metabolismo de los carbohidratos se redirigió para proporcionar carbono y energía a los procesos posteriores. Las redes de señalización, incluyendo la entrada de calcio, las cascadas de MAPK, una respuesta equilibrada a las especies reactivas de oxígeno (ROS) y la regulación hormonal (JA, ABA y etileno), se regularon positivamente. Las vías del shikimato y los fenilpropanoides (PAL, 4CL, aro, etc.) se regularon positivamente, promoviendo la acumulación de lignina y compuestos fenólicos para el refuerzo estructural y la defensa antioxidante.
La deposición de calosa y pectina (HK, GAUT, CAL, etc.) mejoró aún más la cicatrización de heridas y la retención de agua. En conclusión, un periodo de 3 horas es crucial para iniciar un programa adaptativo multifacético en el brócoli que permita cicatrizar heridas, conservar agua y reducir la pérdida de calidad poscosecha.
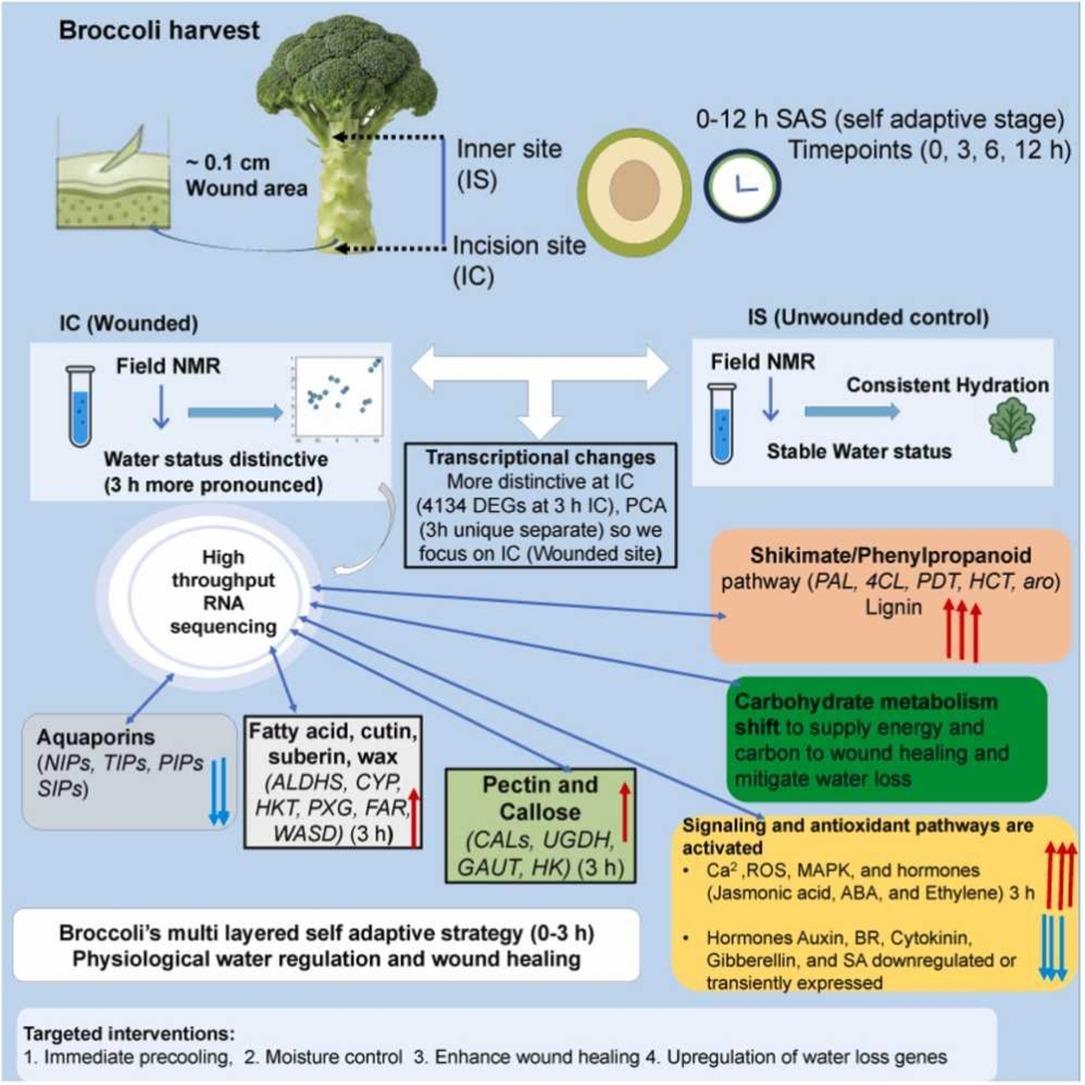
Figure 2 Resumen de lo que sucede con el contenido de agua después de cortar el tallo del brócoli, por Aqleem Abbas et al. (2026)
9. Agua rica en hidrógeno para retrasar el amarillamiento poscosecha en el brócoli
Para investigar el mecanismo del amarillamiento y explorar métodos de control, el estudio de Wang et al. (2025b) se centró en el impacto y el mecanismo del tratamiento con agua rica en hidrógeno (ARH o HRW) en el amarillamiento de los ramilletes de brócoli.
Los resultados de la investigación indican que el tratamiento con ARH mantiene la integridad estructural de los cloroplastos en los ramilletes de brócoli durante el almacenamiento poscosecha, ralentizando la degradación de la clorofila y la acumulación de carotenoides.
Los resultados de RT-qPCR muestran que el tratamiento con HRW inhibe la expresión de los genes de degradación de clorofila BoNOL1/6/10, BoPAO, BoPOX, BoSGR1, BoCLH1, BoNCY y BoNYC, así como de los genes de biosíntesis relacionados con carotenoides BoPSY, BoPDS, BoZDS, BoZISO, BoCRTISO, BoCYP97C1 y BoCCS-1, al tiempo que aumenta el nivel de expresión de BoCCD1/4.
Además, el tratamiento con HRW inhibe la producción de etileno endógeno mediante la regulación negativa de sus genes biosintéticos BoACO1/2 y BoACS1/2/7.
Simuladamente, el tratamiento con HRW regula negativamente los genes de biosíntesis de ABA BoNCED2/3 y BoABA2, lo que resulta en una reducción significativa de los niveles de ABA. En resumen, el tratamiento con HRW retrasa el amarillamiento del brócoli después de la cosecha al inhibir los niveles de etileno y ABA, reduciendo así la degradación de la clorofila y la acumulación de carotenoides.
10. Estrés oxidativo y muerte celular programada en células BY-2
Se ha demostrado que la proteína del canal aniónico dependiente de voltaje (VDAC) desempeña un papel fundamental en la muerte celular programada (PCD). Sin embargo, la función de BoVDAC3 en la respuesta al estrés oxidativo y el proceso de PCD del brócoli poscosecha aún no está clara.
En el estudio de Qian et al. (2025), se sobreexpresó BoVDAC3 en células de tabaco amarillo brillante-2 (BY-2) para investigar su función.
Los resultados mostraron que la morfología celular y la integridad nuclear de las células BY-2 transgénicas se vieron gravemente afectadas tras el estrés oxidativo, en comparación con las células de tipo silvestre (WT). La sobreexpresión de BoVDAC3 aumentó drásticamente el contenido de especies reactivas de oxígeno (ROS) y malondialdehído (MDA) en las células BY-2, al tiempo que disminuyó la síntesis de prolina (Pro) y afectó la función del ciclo AsA-GSH, junto con enzimas antioxidantes clave.
Además, los niveles de expresión de los genes relacionados con el ciclo AsA-GSH (NtGST, NtAO, NtAPX), los genes relacionados con la síntesis de prolina (NtP5CR, NtP5CS, Ntδ-OAT), los genes de enzimas antioxidantes (NtSOD, NtPOD, NtCAT) y el gen antiapoptótico (NtDAD1) se redujeron notablemente en las células transgénicas en comparación con el grupo control tras el tratamiento con H2O2.
Avances en poscosecha de brócoli
Por el contrario, los niveles de expresión de los genes apoptóticos (NtSIPK, NtERF3) aumentaron considerablemente en las mismas condiciones experimentales. Asimismo, el tratamiento con ácido 4,4′-diisotiocianostilbeno-2,2′-disulfónico (DIDS), un inhibidor de VDAC, produjo el fenotipo opuesto al de las células con sobreexpresión de BoVDAC3.
Estos hallazgos sugieren que la sobreexpresión de BoVDAC3 podría acelerar la acumulación de especies reactivas de oxígeno (ROS), induciendo así la muerte celular programada (PCD) en las células BY-2.
11. Conservación a 2 °C y envasado en poliestireno expandido para preservar la calidad del brócoli
Este estudio investiga el manejo poscosecha del brócoli en la empresa XYZ de Japón, centrándose en las técnicas de almacenamiento, envasado y distribución para mantener la calidad del producto.
Mediante un enfoque cualitativo descriptivo, respaldado por observaciones de campo, entrevistas y revisión bibliográfica, la investigación identifica los factores clave de éxito y los posibles puntos débiles.
Los hallazgos de Atica et al. (2025) demuestran que la cosecha óptima a 12 cm de diámetro, el almacenamiento en frío a 2 °C, la correcta clasificación y el uso de envases de poliestireno expandido con cubitos de hielo son esenciales para preservar la frescura. Por el contrario, las fluctuaciones de temperatura y un envasado deficiente comprometen la calidad.
El estudio subraya la importancia de los sistemas de cadena de frío y la clasificación de la calidad para garantizar la competitividad del producto en la cadena de suministro hortícola.
12. Investigación sobre el retraso de la senescencia y el amarillamiento poscosecha inducido por LED
Los microARN (miARN) desempeñan un papel importante en la regulación del crecimiento, el desarrollo y la senescencia de las plantas. Sin embargo, el mecanismo molecular mediante el cual los miARN regulan la senescencia y el amarillamiento del brócoli no está claro.
Wang et al. informan sobre un análisis integrado de datos de transcriptoma, secuenciación de ARN pequeños y secuenciación del degradoma, que reveló que los miARN median la senescencia y el amarillamiento del brócoli al disminuir la actividad de la peroxidasa, regular el catabolismo de la clorofila y mantener la homeostasis de las especies reactivas de oxígeno (ROS).
La irradiación con luz LED roja indujo la expresión de miR9557-5p, miR160a-5p, miR169e-3p y miR9557-5p, lo que a su vez suprimió la expresión de sus genes diana, BoPRX7, BoPRX17, BoPRX22 y BoPRX67, respectivamente.
Además, la irradiación con luz LED roja suprimió la expresión de miR159c-5p, miR168a-5p, PC5P-98712 y miR393b-3p, lo que a su vez potenció la expresión de sus genes diana, BoCHLH, BoPSAK, BoPORC y BoCHLD, respectivamente.
Este modelo regulatorio ayuda a mantener el equilibrio dinámico entre la producción y la eliminación de especies reactivas de oxígeno (ROS), la biosíntesis de clorofila y la homeostasis de ROS, retrasando así la senescencia y el amarillamiento del brócoli. En conjunto, nuestros resultados indican que los microARN regulan el amarillamiento y la senescencia del brócoli mediante la regulación de la expresión de genes diana relacionados con la actividad de la peroxidasa, la unión a la clorofila y los procesos biosintéticos de la clorofila.
13. Respuestas adaptativas para promover la retención sostenible de la calidad en el brócoli Tenderstem®
El manejo poscosecha a baja temperatura se utiliza para reducir las pérdidas de calidad y nutrientes en el brócoli después de la cosecha, aunque esto aumenta la demanda de energía poscosecha y el impacto ambiental de la cadena de suministro de alimentos.
Se ha demostrado que el peróxido de hidrógeno (H₂O₂) y el jasmonato de metilo (MeJA) reducen el amarillamiento poscosecha en el brócoli al mejorar la resistencia al estrés oxidativo y se examinaron como tratamientos para los ramilletes de brócoli Tenderstem® para contrarrestar los efectos de las temperaturas de almacenamiento más cálidas.
La inducción con H₂O₂ se percibió a nivel regulatorio mediante la activación de la vía del jasmonato, pero no redujo el amarillamiento poscosecha.
El tratamiento con MeJA resultó perjudicial para la calidad, incluso en concentraciones que han demostrado ser beneficiosas para las variedades convencionales de brócoli.
Se demostró que la acumulación de carotenoides es un factor determinante en el amarillamiento de Tenderstem® durante el almacenamiento inicial, mientras que la degradación de los fotopigmentos contribuyó a la pérdida de calidad en etapas posteriores. También se demostró que la base fisiológica del amarillamiento de las flores en Tenderstem® se debe a la acumulación de carotenoides, y no a la pérdida de clorofila.
Estos resultados, obtenidos por Gage et al. (2024), resaltan el impacto de los efectos genotípicos y del desarrollo en la percepción y respuesta al estrés, lo que dificulta la optimización de los enfoques basados en la hormesis para el manejo poscosecha.
Avances en poscosecha de brócoli
14. Extractos de glucosinolatos, efectivos contra Botrytis cinerea en manzana
Debido a que las partes comestibles del brócoli son las inflorescencias, se generan grandes cantidades de biomasa no comercial cada año, tanto en el campo como en la industria alimentaria. Con el fin de desarrollar una economía circular en torno al cultivo de brócoli, Eugui Arrizabalaga et al. (2025) desarrollaron extractos de glucosinolatos (GSL) con capacidad antimicrobiana para su uso poscosecha en tomate, manzana y uva blanca de mesa contra enfermedades fúngicas producidas por los patógenos Botrytis cinerea, Alternaria alternata y Penicillium expansum.
Los extractos de GSL provenientes de cultivos orgánicos presentaron un mayor contenido de GSL que los de cultivos convencionales.
Estos extractos no son efectivos en el control de A. alternata y P. expansum, posiblemente debido a la ausencia de sinigrina.
Además, los extractos resultaron ineficaces para controlar B. cinerea en uvas blancas de mesa, posiblemente debido a la condición no climatérica del fruto y a la ausencia de inducción de las defensas vegetales mediadas por etileno.
Sin embargo, los extractos intactos de GSL fueron eficaces para controlar B. cinerea en manzana, mientras que la adición de la enzima mirosinasa también resultó eficaz en tomate y manzana. Por lo tanto, la obtención de extractos de GSL con capacidad biopesticida contra B. cinerea en la poscosecha podría ser una estrategia de economía circular para la agricultura y la industria del brócoli.
15. Extractos de residuos de brócoli para proteger el tomate cherry durante la cosecha
La industria alimentaria ha evolucionado para crear productos que satisfagan las necesidades del consumidor. Factores como el crecimiento demográfico, el desarrollo económico y el ritmo de vida acelerado han influido en la búsqueda de alimentos más nutritivos y funcionales. Los alimentos funcionales se definen como aquellos cuya composición química proporciona beneficios para la salud, ayudando en el tratamiento o la prevención de enfermedades.
Una de las alternativas para que la industria alimentaria responda a estas demandas es el aprovechamiento de los residuos agroindustriales, que se generan y cuantifican por toneladas en todo el mundo y que, si no se procesan adecuadamente, pueden convertirse en contaminantes, generadores de gases de efecto invernadero, olores desagradables y focos de plagas. Debido a su naturaleza biológica, estos residuos poseen una alta actividad enzimática y constituyen una fuente potencial de metabolitos con actividad funcional, cuya extracción e incorporación amaterias primas o productos terminados representa un abanico de posibilidades no solo en la industria alimentaria, sino también en áreas relacionadas con la farmacología, los materiales y la agronomía.
El uso de fitoquímicos, como antocianinas, flavanoles, catequinas, taninos y triterpenos, entre otros, ofrece beneficios que incluyen actividades antioxidantes, antiinflamatorias, antihipertensivas e hipoglucemiantes. La adopción de nuevas técnicas centradas en la
extracción, purificación, caracterización y aplicación de compuestos de interés no solo beneficia el aumento de la producción de alimentos funcionales, sino que también favorece la economía circular y la conservación del medio ambiente.
Uno de los ejemplos considerados en este capítulo es el efecto de los extractos a base de residuos frescos de brócoli en la calidad poscosecha del tomate cherry.
16. El extracto de tallo de brócoli actúa como agente natural contra el pardeamiento en melocotones mínimamente procesados
El estudio de Zhang et al. (2025) se centró en el efecto antipardeamiento del extracto de tallo de brócoli (ETB) en duraznos (melocotones) frescos cortados.
En comparación con la L-cisteína (L-Cys), el ETB mostró una mayor inhibición del pardeamiento superficial en duraznos frescos cortados. Esto se acompañó de una menor actividad de la polifenol oxidasa (PPO) y una regulación negativa de la expresión de PpPPO
El ETB mostró una inhibición no competitiva de la PPO y la mayor tasa de inhibición (85,23 ± 3,86 %) se observó cuando la PPO catalizaba la oxidación del catecol.
Además, se identificaron compuestos que contienen azufre, como metiltiouracilo (MTU), S-metil metanotiosulfonato (MMTS) y tiofeno, 2-propil-, en el ETB, los cuales demostraron inhibir la actividad de la PPO.
El acoplamiento molecular también indicó que estos tres compuestos se unieron espontáneamente a la PPO mediante enlaces de hidrógeno, conjugación π-π e interacciones hidrofóbicas, lo que resultó en la inhibición de la PPO y el pardeamiento asociado.
El BE también aumentó el contenido total de fenoles y flavonoides, así como la capacidad antioxidante en la fruta cortada, como lo sugiere el aumento de la actividad de la catalasa (CAT), la ascorbato peroxidasa (APX) y la tasa de eliminación de radicales libres del ácido 2,2′-azinobis(3-etilbenzotiazolina-6-sulfónico) (ABTS).
Por lo tanto, el ETB podría ser un agente natural contra el pardeamiento que puede utilizarse para inhibir la decoloración inducida por la PPO en el melocotón.
17. H₂S mejora la calidad y mitiga la pérdida de nutrientes de los brotes de brócoli
Los brotes de brócoli son apreciados por su rico perfil nutricional, pero son propensos al deterioro poscosecha y a una rápida pérdida de calidad. La aplicación de sulfuro de hidrógeno (H₂S) antes de la cosecha se ha revelado como una estrategia prometedora para prolongar la vida útil poscosecha.
En este estudio, Wang et al. (2026) trataron brotes de brócoli con diferentes concentraciones (0, 0.2, 0.4, 0.6, 0.8, 1.0, 1.2, 1.4, 1.6, 1.8 y 2.0 mM) de soluciones de NaHS (donante de H₂S) 24 horas antes de la cosecha, identificándose 1.0 mM como la concentración óptima.
Tras la cosecha, los brotes se almacenaron a 25 °C durante 7 días y se analizaron muestras los días 0, 1, 3, 5 y 7.
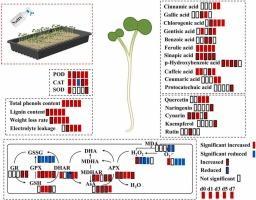
Figura 4. Resumen del efecto de la aplicación de H₂S, por Jue Wang et al. (2026)
El tratamiento con NaHS 1,0 mM antes de la cosecha retrasó significativamente el amarillamiento, redujo la pérdida de peso y disminuyó la fuga de electrolitos en comparación con el control. Aumentó los fenoles totales hasta en un 34,5 % a los 5 días posteriores a la cosecha. Se observó un aumento significativo de ácidos fenólicos específicos (ácido clorogénico, ácido ferúlico, ácido cafeico, ácido sinápico) y flavonoides (quercetina, cinarina).
La defensa antioxidante se fortaleció, con una actividad de peroxidasa un 12,7 % mayor al día 1, una actividad de superóxido dismutasa hasta un 51,3 % mayor a los 7 días, y una actividad de catalasa que alcanzó su pico máximo antes y en niveles más altos que en el control, junto con la activación del ciclo AsA-GSH. Además, el tratamiento con H2S reguló positivamente la expresión de genes clave, incluidos PAL, CM, C4H, C3H, SOD, POD, CAT y GPX.
En resumen, la aplicación de 1,0 mM de H₂S antes de la cosecha retrasó eficazmente la senescencia, mejoró la acumulación de compuestos fenólicos y fortaleció la capacidad antioxidante en los brotes de brócoli, ofreciendo un método práctico para mejorar su calidad poscosecha.
Imagen de portada
https://www.foodnet.ltd.uk/our-products/vegetables/broccoli-floret-15-30mm/
Referencias
Abbas, A., Ni, H., Guo, Y., Ji, N., Hao, S., & Xu, H. (2026). Integrated physiological and transcriptomic analysis of wound-induced water loss mitigation mechanisms in broccoli incision site during the self-adaptive stage (SAS). Postharvest Biology and Technology, 233, 114058. https://doi.org/10.1016/j.postharvbio.2025.114058
Atica, M., Mohamad, H., Farida, M., & Wahana, S. (2025). Broccoli postharvest handling at XYZ Company, Japan. Asian Journal of Management Entrepreneurship and Social Science, 5(3), 1–13. https://eprints.ugj.ac.id/id/eprint/2604/
Eugui Arrizabalaga, D., Fernández San Millán, A., Velasco, P., Veramendi Charola, J., Rodríguez, V. M., & Poveda Arias, J. (2025). Broccoli (Brassica oleracea var. italica) biomass as a resource for obtaining glucosinolate extracts to control postharvest fungal diseases. Journal of Plant Diseases and Protection, 132(3), 1–8. https://doi.org/10.1007/s41348025-01099-w
Gage, E., Terry, L. A., & Falagán, N. (2024). Postharvest stress manipulation in Tenderstem® broccoli: Examining the potential for stress adaptive responses to promote sustainable quality retention. The Journal of Horticultural Science and Biotechnology, 100(4), 484–498. https://doi.org/10.1080/14620316.2024.2449032
Orozco-Sifuentes, M., Salas-Tovar, J. A., Soriano-Melgar, L. de A. A., Campos-Múzquiz, L. G., Nery-Flores, S. D., Palomo-Ligas, L., Esparza-González, S. C., Salazar-Villa, E., & Rodríguez-Herrera, R. (2025). Agro-industrial by-products: Alternative solution for functional food ingredients. En G. Sanghvi, A. K. Bishoyi, S. J. Joshi, & H. A. El Enshasy (Eds.), Sustainable food fortification: Biobased approaches and strategies. Springer. https://doi.org/10.1007/978-981-95-1217-1_14
Qian, Y., Chen, J., Cao, S., Luo, M., Jiao, W., Chen, Y., Wei, Y., Shao, X., & Xu, F. (2025). The function of BoVDAC3 from broccoli in oxidative stress response and programmed cell death in BY-2 cells. Postharvest Biology and Technology, 227, 113582. https://doi.org/10.1016/j.postharvbio.2025.113582
Wang, J., Wang, J., Luo, S., Yue, Z., Li, J., Chen, T., Dai, H., Liu, X., Wang, G., Liu, Z., & Yu, J. (2026a). Enhancement of postharvest quality and antioxidative ability in broccoli sprouts by preharvest application of hydrogen sulfide. Postharvest Biology and Technology, 232, 113956. https://doi.org/10.1016/j.postharvbio.2025.113956
Wang, X., Wang, T., Su, N., Liu, W., Gao, M., Li, R., Li, Y., & Bi, Y. (2025a). L-phenylalanine preharvest spraying effectively enhances the reactive oxygen metabolism and antioxidant capacity in postharvest broccoli. Plant Physiology and Biochemistry, 227, 110185. https://doi.org/10.1016/j.plaphy.2025.110185
Wang, Y., Chen, X., Chen, W., Yang, Z., Shi, L., Li, X., Cao, S., & Song, W. (2025). Hydrogen-rich water delays post-harvest yellowing in broccoli by inhibiting ethylene and ABA levels, thereby reducing chlorophyll degradation and carotenoid accumulation. Postharvest Biology and Technology, 228, 113661. https://doi.org/10.1016/j.postharvbio.2025.113661
Wang, Y., Wang, L., Li, Y., Lei, W., Cheng, J., Cheng, Y., Shen, S., Yao, L., Zhou, L., Liu, Y., Zheng, X., & Huan, C. (2025). Exogenous melatonin activates BoNAC52-BoRBOHF module and antioxidant system involved in the delay in broccoli yellowing during postharvest. Postharvest Biology and Technology, 228, 113675. https://doi.org/10.1016/j.postharvbio.2025.113675
Xue, Q., Gai, Y., Zou, Y., Guo, Y., Ji, N., & Suguro, R. (2025a). Transcriptome and metabolome integrated analysis revealed the effects mechanism of preharvest arginine spraying on carbohydrate and energy metabolism in postharvest broccoli. Food Bioscience, 64, 105961. https://doi.org/10.1016/j.fbio.2025.105961
Xue, Q., Ji, N., Guo, Y., Abbas, A., & Ni, H. (2025b). Multi-omics reveals the regulatory mechanism of nutrients accumulation in broccoli head under preharvest arginine application. Plant Physiology and Biochemistry, 229(Part B), 110434. https://doi.org/10.1016/j.plaphy.2025.110434
Zhang, F., Jiang, S., Jia, S., Gui, B., Wei, Y., Chen, Y., Ye, J., Xu, F., Ding, P., & Shao, X. (2025). Broccoli stem extract enhances browning inhibition in fresh-cut peach fruit by inhibiting polyphenol oxidase activity and improving antioxidant capacity. Postharvest Biology and Technology, 222, 113399. https://doi.org/10.1016/j.postharvbio.2025.113399
Zhu, Y., Ji, S., Li, P., Kang, Y., Wei, B., Luo, M., & Zhou, Q. (2025). Integrating proteomics and phosphoproteomics to reveal the regulatory mechanism of yellowing in postharvest cold storage of broccoli. Postharvest Biology and Technology, 225, 113531. https://doi.org/10.1016/j.postharvbio.2025.113531
Zou, Y., Feng, Z., Sun, L., Guan, Z., Liu, C., & Wang, J. (2024). Exogenous sodium nitroprusside treatment delays postharvest broccoli yellowing by inhibiting endogenous ethylene synthesis. Russian Journal of Plant Physiology, 71, 220. https://doi.org/10.1134/S1021443724607043
ESPECIALISTES EN SERVEIS PER A LA PRODUCCIÓ EDITORIAL, SL
Doctor Manuel Candela 26, 11ª 46021 VALENCIA – ESPAÑA
Tel.: +34-649 48 56 77 / info@poscosecha.com NIF: B-43458744
www.poscosecha.com www.postharvest.biz www.bibliotecahorticultura.com www.tecnologiahorticola.com www.actualfruveg.com