
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
Castro-Villavicencio, A., Contreras-Espinoza, J.E. , Valle-Gough, R.E. , Payán-Arzapalo, M. A., Samaniego-Gámez, B.Y.
Instituto de Ciencias Agrícolas, Universidad Autónoma de Baja California y Facultad de Agronomía, Universidad Autónoma de Sinaloa, México
wwww.bibliotecahorticultura.com
Aplicación de
Alicia Castro-Villavicencio, A.1, Contreras-Espinoza, J.E. 1, Valle-Gough, R.E. 1, Payán-Arzapalo, M. A.2, Samaniego-Gámez, B.Y. 1*
1 Instituto de Ciencias Agrícolas, Universidad Autónoma de Baja California (ICA UABC), Carretera a Delta s/n Ejido Nuevo León, Mexicali, Baja California, México. CP. 21705.
2 Universidad Autónoma de Sinaloa, Facultad de Agronomía, Campus Culiacán. Carretera Culiacán-El Dorado km. 17.5 Culiacán, Sinaloa, México. C.P. 80000. alondra.castro@uabc.edu.mx, econtreras2@uabc.edu.mx, raul.valle@uabc.edu.mx, mariapayan@uas.edu.mx, samaniego.blancka@uabc.edu.mx
Resumen
Las berries son frutas carnosas ricas en nutrientes y fitoquímicos, las cuales proporcionan importantes beneficios para la salud, considerándose como alimentos nutracéuticos. En México, estas frutas representan un componente clave de la economía, ya que el país se ha consolidado como uno de los principales productores y exportadores a nivel mundial. Sin embargo, una característica desfavorable es que son considerados frutos altamente perecederos, lo que los vuelve susceptibles al deterioro de calidad durante el manejo poscosecha. Todos los cambios bioquímicos y fisiológicos ocurridos durante este periodo, son el resultado de una serie de eventos moleculares que estimulan el proceso de maduración. Conocer estos mecanismos a nivel molecular puede contribuir al desarrollo de estrategias para reducir las pérdidas poscosecha. En este sentido, la aplicación de las ciencias ómicas resulta de gran utilidad. Por lo tanto, esta revisión sistemática recopila información actual sobre la aplicación de las ciencias ómicas (transcriptómica, proteómica y metabolómica) en la investigación sobre la maduración poscosecha, con una visión general de la calidad de la fruta. Se destacaron genes y rutas metabólicas clave durante este proceso, y se discutieron las perspectivas de futuros estudios que abarquen el análisis de proteínas como parte integral de la comprensión de la maduración poscosecha en berries.
Palabras clave: ABA, factores de transcripción, genes, metabolómica, proteómica
Abstract
Berries are fleshy fruits rich in nutrients and phytochemicals, providing important health benefits and are considered nutraceutical foods. In Mexico, these fruits represent a key component of the economy, as the country has established itself as one of the leading producers and exporters worldwide. However, a disadvantageous characteristic is that they are considered highly perishable fruits, which makes them susceptible to quality deterioration during postharvest handling. All the biochemical and physiological changes that occur during this period are the result of a series of molecular events that stimulate the ripening process. Understanding these mechanisms at the molecular level can contribute to the development of strategies to reduce postharvest losses. In this regard, the application of omics sciences is highly useful. Therefore, this systematic review compiles current information on the application of omics sciences (transcriptomics, proteomics, and metabolomics) in research on postharvest ripening, with an overview of fruit quality. Key genes and metabolic pathways during this process were highlighted, and prospects for future studies involving protein analysis as an integral part of understanding postharvest ripening in berries were discussed.
Keywords: ABA, genes, metabolomics, proteomic, transcription factors
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
1. Introducción
El término “berries” se refiere a frutos carnosos resultantes de un único ovario floral, botánicamente denominados como bayas. Dentro de las más importantes económicamente se encuentran las fresas (Fragaria spp.), las frambuesas (Rubus idaeus), las moras (Rubus spp.), los arándanos azules (Vaccinium corymbosum) y rojos (Vaccinium oxycoccos) (Dumitrașcu et al., 2024). Las berries son ricas en nutrientes y fitoquímicos como los ácidos fenólicos, los flavonoides y las antocianinas (Waikar & Mandave, 2023). Estos compuestos las convierten en alimentos nutracéuticos al proporcionar importantes beneficios para la salud como propiedades anticancerígenas, antioxidantes y antiinflamatorias, las cuales previenen enfermedades cardiovasculares y neurodegenerativas (Golovinskaia & Wang, 2021).
México se ha consolidado como uno de los principales productores y exportadores de berries a nivel mundial, ocupando el segundo lugar dentro de los 10 principales países exportadores de fresa y frutos del género Vaccinium (FAO, 2023). En 2023, las exportaciones de berries alcanzaron un valor de 16,810,251.71 miles de pesos, siendo las fresas las que se posicionaron entre los principales cultivos que generan más divisas al país (SIAP, 2024). En cuanto a la producción nacional, esta alcanzó las 813,847.35 toneladas con un valor de 22,942,162.75 miles de pesos (SIAP, 2023), destacándose las fresas y las frambuesas entre los 20 principales cultivos con mayor valor de la producción (FAO, 2023). Es por esto que la producción de berries se considera como un pilar de la economía mexicana.
Sin embargo, dentro de los principales inconvenientes se encuentra que las berries son consideradas frutos altamente perecederos, por lo que son propensos al deterioro de las características de calidad durante su manejo poscosecha (Siebeneichler et al,. 2020). De acuerdo con las estadísticas, se han reportado pérdidas de entre el 30% y el 60% según las etapas de la cadena de suministro (FAO, 2023). La pérdida de calidad y la disminución de la vida útil de estos frutos se debe principalmente a su actividad metabólica relativamente alta, a la interacción entre fenoles, al estrés oxidativo y a la actividad de enzimas como la pectina metil esterasa (PME), la poligalacturonasa (PG) y la pectato liasa (PL) (Belay & Caleb, 2022; Siebeneichler et al,. 2020). Todos estos cambios bioquímicos y fisiológicos ocurridos durante el periodo poscosecha son el resultado de una serie de eventos moleculares que comienzan con la activación de vías de señalización hormonal que estimulan la expresión coordinada de genes relacionados con la maduración (Eichholz et al., 2015).
En las berries, la maduración implica una alteración del color, del contenido de azúcares, ácidos orgánicos y compuestos volátiles, que influyen en el sabor, el aroma y la firmeza (Sánchez et al., 2022). Por lo tanto, el obtener información a nivel molecular durante este proceso podría servir para desarrollar estrategias que reduzcan las pérdidas de calidad durante la maduración poscosecha (MP) (Habibi et al., 2024). En este sentido, la aplicación de las ciencias ómicas permite realizar un exhaustivo análisis de componentes moleculares que van desde los genes hasta los metabolitos funcionales durante la etapa de maduración de la fruta (Kim et al., 2023). En berries, las ciencias ómicas han permitido comprender la función e interacción de las proteínas expresadas durante la maduración que regulan la calidad poscosecha (Figura 1) (Ban et al., 2018). Asimismo, se han utilizado para examinar e identificar los metabolitos y las rutas metabólicas clave que están altamente correlacionadas con los cambios en la composición nutricional durante la MP (Xu et al., 2024). Esto ha permitido realizar investigaciones en las cuales el silenciamiento o la sobreexpresión de determinados genes han influido en la prolongación de la vida útil de estos frutos (Vallarino et al., 2020). Por lo tanto, esta revisión
www.bibliotecahorticultura.com
busca resumir sistemáticamente la contribución de las ciencias ómicas en la comprensión de la maduración poscosecha de berries.
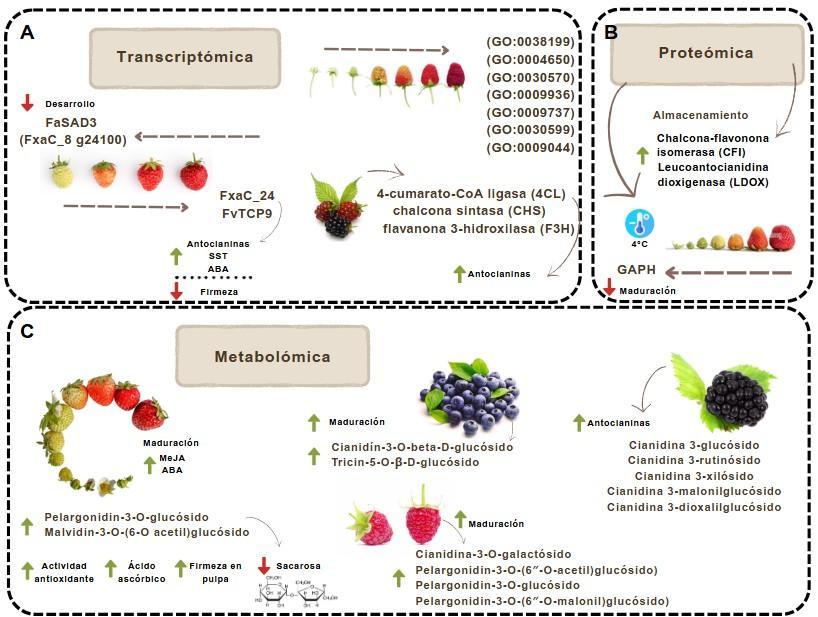
Figura 1. Ciencias ómicas y moléculas clave presentes durante la maduración y manejo poscosecha en berries. A) Transcritos claves involucrados en procesos de maduración, desarrollo y retraso de maduración en frutos de fresa, genes diferencialmente expresados en el proceso de degradación de la pared celular en frambuesa y genes asociados en la biosíntesis de flavonoides en zarzamoras identificados mediante tecnología transcriptómica. B) Proteínas expresadas durante el almacenamiento poscosecha de fresa identificadas a través de análisis proteómicos. C) Fitohormonas dominantes y perfil de antocianinas en el proceso de maduración en fresa, compuestos fenólicos y antocianinas con mayor abundancia en la maduración del arándano y la frambuesa identificados a partir de análisis metabolómicos.
2. Cambios fisiológicos y bioquímicos durante la maduración poscosecha de berries
Después de la cosecha, la fruta permanece biológicamente activa y continúa el proceso metabólico de maduración (Belay & Caleb, 2022). En las “berries” la maduración es un proceso que implica cambios bioquímicos y fisiológicos, entre ellos: (i) alteraciones del color debido a la sustitución de clorofilas por antocianinas y carotenoides; (ii) cambios de textura como resultado de la degradación de la pared celular y la pérdida de turgencia celular; y (iii) una alteración del aroma y el sabor debido a la acumulación de azúcares, ácidos orgánicos y compuestos volátiles (Perotti et al., 2023).
De estos cambios, algunos son necesarios para alcanzar la calidad de consumo, como el color y el sabor. Sin embargo, otros como la degradación de la pared celular y la pérdida de turgencia
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
representan una amenaza a los atributos de calidad poscosecha (Wang et al., 2020). Los rasgos asociados con la maduración están gobernados por factores externos como la luz y la temperatura, y factores internos como la regulación genética y el control hormonal (Moya et al., 2019). En cuanto a esto último, en frutos no climatéricos, como las berries, el etileno parece desempeñar un papel menor y no necesariamente inicia la maduración de la fruta. En cambio, el ácido abscísico (ABA) se considera la hormona clave que regula este proceso (Figura 2) (Xu et al., 2024) Adicionalmente, los factores de transcripción (FT) también juegan un importante papel como iniciadores de la maduración (Sánchez et al., 2022).
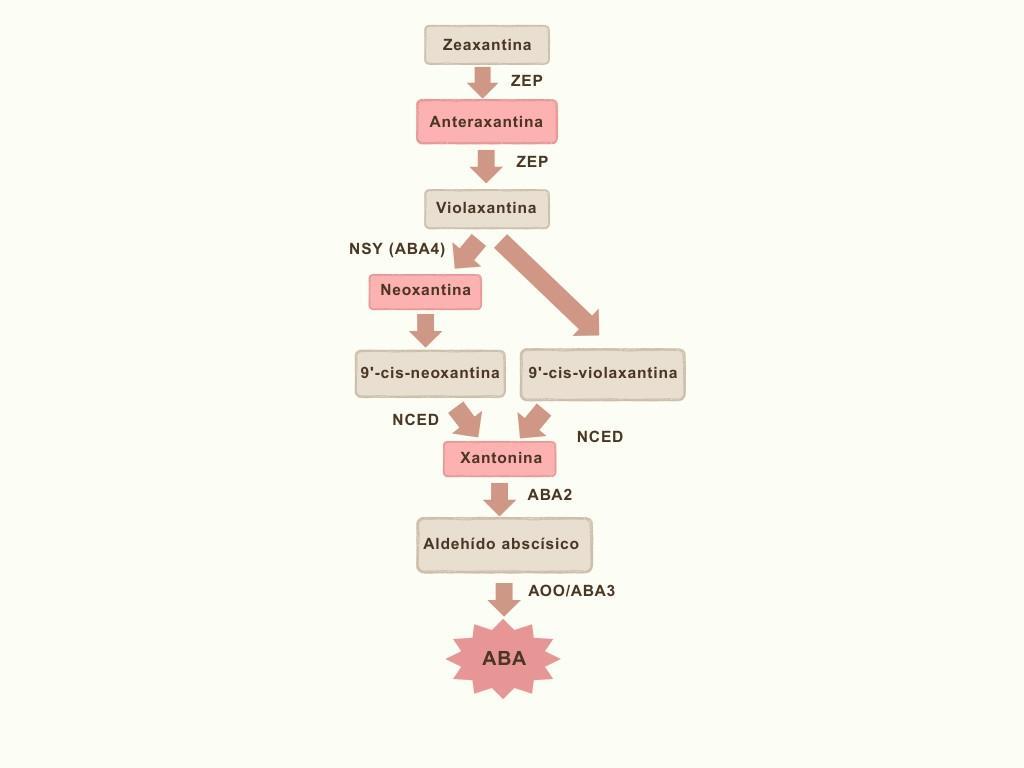
Figura 2. Vía biosintética de ABA en plantas superiores. ZEP, zeaxantina epoxidasa; NSY, neoxantina sintasa; NCED, 9- cis-epoxicarotenoide dioxigenasa; ABA2, deshidrogenasa/reductasa xantoxina; AOO/ABA3, aldehído oxidasa abscísica. Adaptado de Karppinen et al. (2013) y Wu et al. (2023).
3. Maduración poscosecha en fresas
Las etapas de desarrollo del fruto de fresa generalmente se consideran receptáculo verde pequeño (SG), verde grande (LG), blanco (WT), rojo parcial (PR) y rojo completo (FR) (Yang et al., 2024). Como planta modelo no climatérica, el proceso de maduración se desencadena por el ácido abscísico (ABA) en lugar del etileno, comenzando en la etapa WT (Perotti et al., 2023). El incremento de ABA durante la maduración de este fruto está estrechamente relacionado con la expresión del gen NCED, el cual codifica para la proteína 9-cis-epoxicarotenoide dioxigenasa (NCED), enzima clave en la escisión de los β-carotenos 9'-cis-violaxantina y 9'- cis-neoxantina, precursores del ABA (Li et al., 2022).
En la fresa se han descrito previamente tres genes NCED (FaNCED1/2/3), los cuales al sobreexpresarse o silenciarse, incrementan o disminuyen el contenido de ABA, lo que resulta en la promoción o retraso de la maduración (Martín et al., 2021). Por ejemplo, al suprimir la expresión del gen FaNCED1 se produce un fenotipato incoloro en fresa, como resultado de la inhibición del proceso de maduración el cual desecadena la biosíntesis de antocianinas. Dicho efecto se puede revertir mediante un tratamiento exógeno con ABA (Li et al., 2022). Este tipo de respuestas celulares al ABA están mediadas por un grupo de proteínas solubles llamadas receptores resistentes a la pirabactina (PYR) (Álvarez et al., 2023). La activación de estos receptores induce la formación de un complejo con la proteína fosfatasa 2C (PP2C), el cual libera quinasas relacionadas con SNF1 (SnRK), para fosforilar factores de transcripción (FT) y otros mediadores de la respuesta del ABA (Moya et al., 2023). Los FT de la caja MADS parecen ser dianas clave de la señalización de ABA (Chen et al., 2022). Vallarino et al. (2020) reportaron que el silenciamiento del gen FaMADS9 usando ARN de interferencia (ARNi) en la fresa (F.× ananassa 'Camarosa') redujo entre un 22 y un 49% los niveles de ABA. De igual forma, la expresión de los genes FaNCED1/2/3 se redujeron en un >70%. Por lo tanto, la maduración de la fresa se considera como un proceso genéticamente programado y altamente coordinado.
El ablandamiento de la fruta es un proceso complejo que ocurre durante la maduración del fruto, el cual incluye el desmontaje de la pared celular y la lámina media (Moya et al., 2019). Este desmontaje resulta de la despolimerización y la solubilización de polisacáridos como las hemicelulosas y las pectinas, siendo estas últimas el componente de la pared celular que sufre los cambios más extensos (Zhang et al., 2022). Las enzimas que participan en este proceso son PL, PG, PME, PE (pectina esterasa), β-Gal (β-galactosidasa), entre otras (Figura 3) (Sánchez et al., 2022). Actualmente se han caracterizado genes y FT que participan en la actividad de estas enzimas, y se ha reportado que el silenciamiento de los mismos reduce el ablandamiento y aumenta la vida útil poscosecha (López et al., 2023).
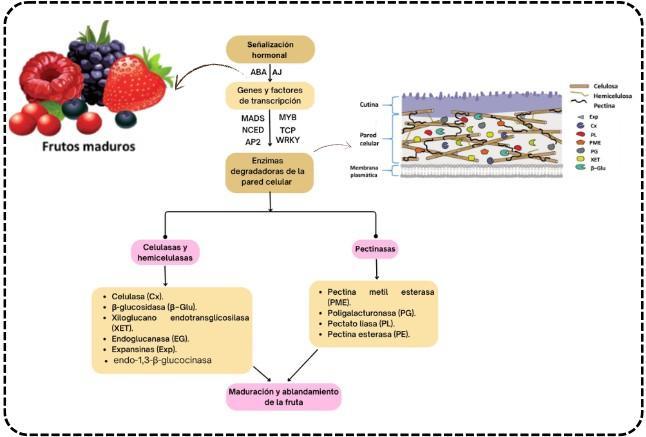
Figura 3. Enzimas relacionadas con la degradación de la pared celular durante la etapa de maduración poscosecha en berries. Adaptado de Li et al. (2024) y Wang et al. (2023).
En la fresa cultivada, se han caracterizado dos genes relacionados con la enzima PG, concretamente FaPG1 y FaPG2, los cuales se regulan positivamente durante la maduración (Zhao et al., 2024). El desarrollo de plantas transgénicas en las cuales se ha silenciado el gen FaPG1, ha demostrado una clara relación entre el grado de edición de FaPG1 y la firmeza del fruto en la cosecha. Se ha observado que en las líneas con las mayores eficiencias de edición (> 95%) se producen frutos en promedio 57% más firmes que el control, sugiriendo así que la ralentización del ablandamiento se debe al silenciamiento del gen FaPG1 (López et al., 2023).
De manera similar, se han desarrollado plantas con sobreexpresión y con supresión del FT FvWRKY48, relacionado con la enzima PL (Zhang et al., 2022). Los resultados obtenidos indicaron que la sobreexpresión de FvWRKY48 acortó el desarrollo y aceleró la maduración de la fruta en al menos 7 días. En contraste, el desarrollo y la maduración de la fruta se retrasó sustancialmente en la línea FvWRKY48-RNAi. Obteniéndose de esta manera frutos con menor firmeza en las plantas FvWRKY48, con respecto a los frutos de las plantas FvWRKY48-RNAi. La firmeza es uno de los rasgos de calidad más importantes en las fresas, impactando directamente en el valor comercial del fruto. En consecuencia, existe un creciente interés de investigación en el desarrollo de técnicas que permitan controlar eficazmente el ablandamiento de la fruta, evitando así la pérdida de esta característica (Zhao et al., 2024).
4. Maduración poscosecha en arándanos
El crecimiento y desarrollo del fruto del arándano se clasifica generalmente en tres etapas específicas de madurez: inmaduro verde (IG), azul rosado (BP) y maduro (MB) (Eichholz et al., 2015). El desencadenamiento de la maduración en estos frutos se considera un tema inconsistente. Esto debido a que algunos estudios han observado un aumento en la producción de etileno durante la maduración de los frutos, mientras que otros han respaldado el papel activo del ABA durante este proceso, pudiéndose clasificar, así como frutos climatéricos o no climatéricos (Farneti et al., 2022). Trabajos como el de Karppinen et al. (2013), señalan que en los arándanos al igual que en las fresas, la fase de desarrollo y de maduración son estimuladas por señales hormonales derivadas del ABA. En este estudio encontraron que el nivel del ABA se mantiene relativamente bajo en la flor, aumentando considerablemente al inicio de la maduración del fruto y disminuyendo nuevamente en el fruto completamente maduro.
Algunos estudios han demostrado que el someter los frutos a un rociado exógeno con ABA podría promover la maduración (Yang et al., 2023). Similarmente, estudios a nivel molecular han reportado que el tratamiento con ABA poscosecha en el arándano conduce a la inducción de la expresión de genes que codifican enzimas modificadoras de pectina (VcPG1, VcPG3, VcPE1, VcPE2, VmPL, VmRGLyase, Vm β GAL1 y Vm β GAL2), así como genes involucrados en la despolimerización de la hemicelulosa, incluyendo VmXTH, VmCEL y tres expansinas (VmEXP1, VmEXP2 y VmEXP3) (Karppinen et al., 2018; Zhou et al., 2021). Demostrando que el ABA influye directamente en la expresión de genes asociados a la MP de estos frutos. Sin embargo, también se han encontrado estudios moleculares que reportan que el etileno es capaz de aumentar la actividad de las enzimas PE, PG, Cx y β-GAL, y que este aumento corresponde al mismo punto en el que la firmeza del fruto disminuye significativamente (P<0,05) (Wang et al., 2020).
Manteniéndose así el debate sobre la clasificación de los arándanos.
Por otra parte, se ha demostrado que el inhibir la expresión de los genes relacionados con las enzimas asociadas a la maduración, mejora la vida útil de los arándanos. Por ejemplo, la inhibición del gen VcPG1 y la disminución de la expresión relativa del gen Vcβ−Glu a través de
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries www.bibliotecahorticultura.com
un tratamiento con poliamina putrescina, redujo aproximadamente el 9% de pérdidas por pudrición durante la etapa de almacenamiento (Song et al., 2022). Del mismo modo, la disminución de la actividad de las enzimas PME, PG, β-Gal y Cx mediante la inhibición de la expresión transcripcional de los genes VcPE, VcPG, y VcGAL1, previno la senescencia de los arándanos en la etapa poscosecha (Liu et al., 2023). Esto dado que se logró mantener la firmeza del fruto al retrasar la degradación de la pectina, la celulosa y otros polisacáridos de la pared celular.
5. Maduración poscosecha en frambuesas
El desarrollo de la frambuesa se ha clasificado de manera general en siete etapas: verde pequeño (SG), verde medio (MG), verde grande (LG), blanco (W), rosa (P), etapa roja o madura (R) y fruto demasiado maduro (OR) (Monsalve et al., 2022). El inicio de la maduración ocurre en la etapa W, con un aumento en el contenido de ABA tanto en tejidos de la drupa como del receptáculo, alcanzando el nivel máximo en la etapa R. Se han reportado que los genes RiNCED (similar a la 9-cis-epoxicaritenoide dioxigenasa) y sus receptores RiPYL (similares a los PYR), se encuentran relacionados con la biosíntesis de esta hormona vegetal (Álvarez et al., 2023).
Estudios actuales han revelado que PG es uno de los genes cruciales involucrados en la modificación de la pared celular durante la maduración de la fruta, siendo la sobreexposición de RiPG2 el responsable del aumento de la actividad enzimática (Li et al., 2024). Adicionalmente, se altera el contenido de los componentes de la pared celular facilitando la degradación de la pectina y regulando positivamente la expresión de los genes PME y PL y enzimas implicadas en la degradación de la celulosa y la hemicelulosa, como CX (Celulasa), β−Glu (β-glucosidasa), XET (Xiloglucano Endotransglicosilasa) y EG (Endoglucanasa), (Zhao et al., 2024). Travisany et al. (2019), reportan cuatro genes relacionados con el proceso de desensamblaje de la pared celular en frambuesa; poligalacturonasa 2 (RiPG2), expansina (RiExp), expansina-A1 (RiExpA1) y pectato liasa (RiPL) en donde se sugiere una probable asociación de los transcritos RiPG2 y RiPL con la pérdida de firmeza y la maduración del fruto. De manera específica, se ha detectado la expresión de RiExpA1 en diferentes etapas de maduración de frutos de frambuesa, mostrando mediante la técnica de Northern blot un aumento en el nivel de acumulacion de transcripción del gen en las últimas etapas de maduración. Esto indica que la expresión de RiEXPA1 está estrechamente relacionada con la maduración y el ablandamiento de los frutos de frambuesa (Zheng et al., 2010).
Una de las fitohormonas mayormente consideradas en los procesos fisiológicos de las frutas es el ácido indol-3-acético (IAA), el cual se describe como un importante regulador en el desarrollo (Cherian et al., 2014). Actualmente, mediante un estudio de la expresión de dos genes de IAA amido sintetasa (GH3) en frambuesa se observó un aumento en los niveles de transcripción en uno de los genes (RiGH3.1), lo cual sugiere que la conjugación de IAA por RiGH3.1 podría desempeñar un papel central para el inicio de la maduración de este fruto (Bernales et al., 2019).
6. Maduración poscosecha en zarzamoras
El desarrollo de las zarzamoras se puede clasificar en cuatro etapas según el peso y el color del fruto. Las diferentes etapas se denominan: fruto verde grande (LG); fruto cambiante (T); fruto 50% negro (50%R); y fruto maduro (R) (Castro et al., 2023). A medida que los frutos maduran la fragilidad en la piel aumenta, promoviendo el ablandamiento y disminuyendo la vida útil, lo que
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
afecta directamente su valor comercial (Zhang et al., 2021). Actualmente, el almacenamiento en frío es el principal método para prolongar su vida útil. Se ha reportado que las moras recién cosechadas pueden durar hasta 14 días a 0 °C con una humedad relativa superior al 90 %, aunque su vida útil promedio es de 2 a 5 días (Martínez et al., 2022). Aunque el ablandamiento de la mora se correlaciona con la solubilización y despolimerización de los componentes de la pared celular durante la maduración, los mecanismos que regulan estos procesos rara vez se han explorado en este tipo de frutos (Zhang et al., 2021).
Los datos disponibles sobre la integración de características comunes en los cambios fisiológicos, bioquímicos y moleculares en relación con la firmeza de la fruta durante el ablandamiento de la zarzamora son limitados (Zhang et al., 2019). Estudios actuales, han reportado que las EG tienen papeles clave en la síntesis, remodelación y degradación de la pared celular. Estas enzimas están involucradas en procesos asociados con la abscisión de órganos y el ablandamiento de la fruta (Zhang et al., 2023). De manera específica, en el fruto de zarzamora se ha determinado que la sobreexpresión de los genes RuEG1 y RuEG2 participan directamente en la degradación de la celulosa de la pared celular. Su expresión se ha logrado disminuir mediante tratamientos con ácido ferúlico y natamicina (Liu et al., 2024).
En frutos híbridos variedad “Boysenberry” se ha identificado que a partir de los 33 días después de la floración (DAF) la expresión de RuEG6 aumenta drásticamente hasta la maduración completa a los 39 DAF. En particular, las actividades de EG y la expresión de RuEG6 mostraron patrones de cambio similares tras la coloración del fruto, lo que indicó que la actividad de EG puede estar regulada por las etapas de maduración del fruto a nivel transcripcional (Zhang et al., 2023). Una investigación anterior, reportó que a los 33 DAF también se observó una degradación progresiva de la pared celular, periodo de tiempo coincidente en el que se encontró un aumento notable en la actividad de PME y XET, y un aumento extremadamente alto de Cx (Zhang et al., 2019). El gen codificante para PME junto con los que codifican para PG y endo-1,3β-glucocinasa, se han asociado con el 27% de la varianza de la firmeza en frutos de zarzamora. Además, los homólogos de PME se han localizado cerca del locus del rasgo cuantitativo (QTL) de firmeza de estos frutos (Chizk et al., 2023). Por otra parte, un grupo de genes pertenecientes a la familia AP2 también han sido asociados a la maduración de estos frutos al mostrar un aumento en su expresión durante esta etapa. Cabe mencionar que las funciones específicas de AP2 se encuentran aún en etapa de investigación (Zhang et al., 2024).
Algunas otras investigaciones se han enfocado en evaluar la interacción de ciertas fitohormonas con el ablandamiento de la fruta. Por ejemplo, se ha encontrado que el tratamiento de las zarzamoras con ácido salicílico (SA) 3mM ha mostrado efectos positivos en la ralentización de la actividad enzimática de PG en comparación con frutos no tratados (Martínez et al., 2022). Estas respuestas pueden asociarse con la activación del metabolismo de fenilpropanoides, que está relacionado con actividades de defensa como el refuerzo de la pared celular. Contrariamente al efecto del SA, el tratamiento con ABA 1mM en zarzamoras Navaho mostró aumentos en la actividad de PG y EG en el mismo período de tiempo en el que se detectó una disminución pronunciada de los contenidos de pectina y celulosa (Zhang et al., 2021).
7. Transcriptómica y su impacto en estudios de maduración poscosecha
La transcriptómica es la investigación en particular de los niveles de ARNm dentro de un genoma mediante el empleo de tecnologías de alto rendimiento. En el campo del manejo poscosecha, esta herramienta se ha utilizado para comprender los mecanismos moleculares y las variaciones
en la expresión génica que intervienen en el proceso de maduración (Habibi et al., 2024). Recientemente, se ha utilizado la tecnología de análisis transcriptómico para la evaluación de la abundancia de transcripción de los genes FaFAD durante tres etapas de desarrollo del fruto de fresa (Yang et al., 2024). En dicha investigación, se logró identificar un aumento gradual del nivel transcripcional de FxaC_24 g05240 durante la etapa de desarrollo, sugiriendo su desempeño en la regulación de la maduración. Asimismo, se identificó el gen FaSAD3 (FxaC_8 g24100) como un candidato clave en el retraso del desarrollo del fruto, lo cual lo vuelve atractivo para futuros estudios enfocados en la prolongación de la vida de anaquel de la fresa.
En otro estudio transcriptómico se utilizó la clasificación Gene Ontology (GO) y el análisis de enriquecimiento de la Enciclopedia de Genes y Genomas de Kioto (KEGG) a través del software TBtools-II, como parte de investigar el mecanismo molecular que contribuye a la maduración de frutos de fresa 'snow white' (SW) (Xu et al., 2024). Los resultados del análisis arrojaron que los genes de expresión diferencial (DEG) se asociaron principalmente con la vía de "Metabolismo del almidón y la sacarosa" (ko00500) y la vía de "Transducción de señales de hormonas vegetales" (ko04075)” durante los procesos de maduración. Esto se asocia con la función que cumple la sacarosa como molécula de señalización al interactuar con el ABA regulando la eficiencia de la maduración (Li et al., 2022). Se ha encontrado que el 29% de todos los genes sobreexpresados y relacionados con la maduración de fresa han sido activados tanto por ABA como por auxinas, el 9 % activados sólo por ABA y el 28 % activados sólo por auxinas, lo que sugiere que otras hormonas (p. ej. etileno o giberelinas) y/o señales (p. ej. estrés oxidativo) están involucradas también en estos procesos de maduración del fruto (Medina et al., 2016). Por otro lado, se ha evaluado el papel de FvTCP9 en el desarrollo y maduración de frutos de fresa de sobreexpresión (OE) (Xie et al., 2020). Durante esta evaluación se ha identificado que la sobreexpresión y regulación positiva de este FT acelera la acumulación de antocianinas, el contenido de azúcares solubles (SST) y el contenido de ABA, al mismo tiempo que reduce la firmeza.
En el caso de los arándanos, la transcriptómica ha evaluado el retraso en el ablandamiento del fruto mediante un tratamiento de vapor de etanol, en donde se ha evidenciado el potencial de disminución de expresión génica de 9758 DEG sobre las enzimas relacionadas con la degradación de la pared celular (Ji et al., 2023). Estos hallazgos sugieren que el tratamiento regula la expresión génica relacionada con la firmeza del arándano durante la poscosecha. En arándanos “Jewel” mediante esta tecnología se han identificado 4446 genes que se expresan diferencialmente entre el fruto verde y el fruto maduro (Foster et al., 2019). Los genes que se regulan positivamente durante la maduración consistieron en aquellos involucrados en la actividad de la hidrolasa, la degradación de la pared celular, el transporte de azúcar y la acumulación y biosíntesis de antocianinas. De igual manera, se han estudiado los cambios en los compuestos orgánicos volátiles (COV) durante el almacenamiento poscosecha de estos frutos (Yuan et al., 2020). Los genes que codifican enzimas implicadas en el metabolismo de aminoácidos, lípidos y terpenoides se enriquecieron significativamente durante el almacenamiento poscosecha, lo cual podría estar asociado con el metabolismo de COV implicados en el aroma y sabor de los frutos a través del progreso de la maduración.
La transcriptómica se ha utilizado también para análisis enfocados a la comprensión de la importancia de la señalización hormonal y el impacto del ablandamiento en el fruto de frambuesa (Travisany et al., 2019). Identificando dos grupos importantes de DEG durante el proceso de degradación de la pared celular como parte de la maduración del fruto desde la expresión en flor hasta el estado rosado. Dentro de los grupos se encontraron receptores de
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
etileno (GO:0038199), poligalacturonasa (GO:0004650), pectato liasa (GO:0030570), expansinas (GO:0009936), proteínas de respuesta al ácido abscísico (GO:0009737), pectinesterasas (GO:0030599), xilano 1,4-beta-xilosidasa (GO:0009044), entre otros. Finalmente, en zarzamoras se ha evidenciado la regulación positiva de doce genes que codifican para la invertasa (INV), dos genes que codifican para la sacarosa sintasa (SUS) y tres para la sacarosa-fosfato sintasa (SPS) durante la maduración, a través del uso de la transcriptómica (Yang et al., 2021). Estas enzimas participan en la degradación de la sacarosa que aumenta los SST en los frutos maduros. Además, se encontraron cinco genes de 4-cumarato-CoA ligasa (4CL), dos genes de chalcona sintasa (CHS) y cinco genes de flavanona 3-hidroxilasa (F3H), enzimas clave en la biosíntesis de flavonoides. La actividad de dichos genes se asoció con el contenido de antocianina 28 veces mayor en la etapa negra con respecto a la etapa roja.
8. Impacto de la metabolómica en la investigación sobre la maduración poscosecha
La metabolómica proporciona una descripción general completa de los metabolitos presentes en frutas, revelando las vías metabólicas responsables del desarrollo del sabor, la producción de aroma y el metabolismo de los nutrientes (Habibi et al., 2024). En frutos de fresa 'snow white' (SW) se realizó un análisis de fitohormonas examinando los patrones de acumulación de ABA, IAA, ácido giberélico (GA) y jasmonato de metilo (MeJA) en tres etapas distintas de maduración (Xu et al., 2024). Encontrándose que el ABA y el MeJA fueron las fitohormonas dominantes durante el proceso de maduración, al acumularse significativamente más que IAA y GA. De hecho, estas fitohormonas mostraron una tendencia a la baja en su conjunto. Estas mismas fitohormonas se analizaron durante el almacenamiento de arándanos, obteniéndose que el orden del contenido de fitohormonas fue ABA>IAA>SA>JA>GA (Zhou et al., 2021). Siendo el ABA la fitohormona más abundante en todo momento y la cual nunca presentó disminución durante el periodo de almacenamiento. Su contenido se correlacionó de manera altamente significativa con el contenido de polisacáridos y de forma altamente negativa con la disminución de la firmeza de la fruta.
En lo referente al perfil de antocianinas, los estudios metabolómicos en fresa han reportado a la pelargonidin-3-O-glucósido como una de las principales antocianinas durante la maduración poscosecha (PR), junto con malvidin-3-O-(6 -O- acetil) glucósido, difiriendo con respecto a las fresas cosechadas en su madurez completa (FR) (Siebeneichler et al., 2020). En estas últimas, las antocianinas principales son cianidin-3-O-glucósido y peonidin-3-monoglucósido. En el caso de las frutas PR muestran además mayor actividad antioxidante, mayor contenido de ácido ascórbico, menor contenido de azúcar (especialmente sacarosa), mayor firmeza de pulpa y mayor acidez (especialmente ácido cítrico), en comparación con las frutas FR. Estos resultados indican colectivamente que la maduración poscosecha de la fresa es distinta de la maduración in vivo.
Por otra parte, un estudio sobre la madurez poscosecha de fresas coincide con respecto a que los niveles de pelargonidina-3-glucósido aumentan significativamente con el progreso de la madurez y el período de almacenamiento (Kim et al., 2023). Adicionalmente, en el mismo estudio, se observaron cambios en el metabolismo secundario de los ácidos fenólicos durante la maduración. Los niveles de ácidos fenólicos, incluyendo los derivados del ácido cinámico, aumentaron significativamente, y sus niveles en el día 12 al 100% de madurez fueron aproximadamente 32.9, 4.9 y 4.5 veces más altos que los del día 0 al 50% de madurez,
respectivamente. Contrariamente, los niveles de sacarosa y sorbitol disminuyeron con el aumento de la madurez y el período de almacenamiento.
En arándanos maduros los metabolitos secundarios predominantes también son los compuestos fenólicos, difiriendo de los arándanos inmaduros en donde predominan metabolitos primarios (lípidos, aminoácidos, ácidos orgánicos y carbohidratos) (Nguyen et al., 2024). Particularmente, los compuestos fenólicos que se presentaron en mayor medida durante la maduración fueron de la clase de los flavonoides, siendo el cianidín-3-O-beta-D-glucósido (antocianinas) y el tricin5-O-β-D-glucósido (flavona) los más abundantes. Además, la cantidad de ABA incrementó de manera significativa de manera previa a la maduración completa del fruto. El análisis metabolómico también ha participado en el estudio de cambios del perfil aromático en frutos de arándanos 'Garden blue' durante el almacenamiento poscosecha (Yuan et al., 2020). Los principales grupos de COV observados fueron ésteres y terpenos, siendo el acetato de etilo (éster) el principal COV que mostró un aumento drástico. La acumulación de acetato de etilo posiblemente fue en respuesta al envejecimiento de la fruta y puede afectar la calidad del aroma del fruto, ya que imparte un aroma similar a la acetona y puede ejercer un efecto supresor en la percepción de otros ésteres importantes. Identificar este compuesto durante la etapa poscosecha permite sugerir la utilización de contenedores no sellados por completo en el empaque de arándanos.
De manera semejante a la fresa y los arándanos, en frambuesas y zarzamoras también se utilizó la metabolómica para determinar las antocianinas específicas que aumentaron durante la maduración poscosecha. En cuanto a las frambuesas, se encontraron 10 tipos de antocianinas que mostraron tendencias crecientes (Wang et al., 2024). De las cuales, ocho (por ejemplo, cianidina-3-O-galactósido y pelargonidin-3-O-(6″-O-acetil) glucósido) aumentaron ligeramente, y dos (pelargonidin-3-O-glucósido y pelargonidin-3-O-(6″-O-malonil) glucósido) aumentaron bruscamente, siendo los principales contribuyentes de la pigmentación del fruto. En las zarzamoras, todas las antocianinas detectadas fueron derivadas de cianidina, como la cianidina 3-glucósido, cianidina 3-rutinósido, cianidina 3-xilósido, cianidina 3-malonilglucósido y cianidina 3-dioxalilglucósido (Kim et al., 2019). En general, las concentraciones de antocianina fueron significativamente mayores en las drupas negras que en las rojas. Específicamente, la concentración de cianidina 3-glucósido en las drupas rojas fue del 54%, 62,7% y 58,3% de la de las drupas negras, respectivamente.
9. Importancia de la proteómica en el estudio poscosecha
La proteómica permite la identificación y cuantificación de proteínas involucradas en vías metabólicas importantes que ocurren durante el manejo poscosecha (Habibi et al., 2024). Hasta el momento, existe poca información disponible sobre la regulación de la síntesis de proteínas dirigida a la comprensión de los mecanismos de maduración de las berries, la mayor parte de la información se ha enfocado en el manejo poscosecha de estos frutos (Li et al., 2013; Li et al., 2016). En la fresa, el análisis proteómico permitió identificar dos proteínas que se regulan diferencialmente durante la cosecha y el almacenamiento poscosecha, la chalcona-flavonona isomerasa (CFI) y la leucoantocianidina dioxigenasa (LDOX) (Li et al., 2016). Ambas proteínas se regularon a la baja durante la cosecha, mientras que durante el almacenamiento poscosecha se regularon al alza. Especialmente, la expresión al alza del gen LDOX contribuyó a la inducción del contenido de antocianina en la fresa en respuesta a la pulverización con citoquinina exógena.
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
Los resultados manifestaron que la aceleración de la vía de los fenilpropanoides en la fresa fluía hacia la biosíntesis de antocianinas y flavonoides después del almacenamiento.
Del mismo modo, se ha analizado el papel de las proteínas en las vías metabólicas de la fresa bajo diferentes condiciones de almacenamiento (Lv et al., 2022). Encontrándose que las fresas almacenadas a una temperatura de 4°C regulan negativamente las vías de glucólisis/gluconeogénesis y biosíntesis de metabolitos secundarios en comparación con las almacenadas a 23°C y una humedad relativa del 70-85%. Al reducir el metabolismo general, los protocolos de almacenamiento en frío retrasan los procesos de maduración y senescencia de los frutos (Brizzolara et al., 2020). En otro estudio proteómico en estos frutos se compararon los perfiles proteicos en almacenamiento a temperatura ambiente (TA), baja temperatura (BT) y en atmósfera controlada (AC), mostrandose coincidentemente una disminución general en la expresión de proteínas en BT y AC en comparación a TA (Li et al., 2015). Además, en BT se mostró una disminución de la enzima gliceraldehído-3-fosfato deshidrogenasa (GAPDH) relacionada con el metabolismo energético, lo que puede asociarse con un retraso indirecto de la maduración. De manera adicional, se ha evaluado la expresión de proteínas bajo otras condiciones de almacenamiento, como los tratamientos con ozono. En estas condiciones se ha reportado que la diferencia en la función de las proteínas de las fresas en el grupo control con respecto a los tratados se relacionaron con el metabolismo energético, la síntesis de antocianinas, el metabolismo de la celulasa y la actividad hidrolasa, principalmente (Chen et al., 2019). En general, la expresión de proteínas mostró una tendencia a la baja con el tratamiento con ozono
Hasta la fecha, el estado de la investigación en proteómica aplicada a berries es moderadamente desarrollada, enfocado principalmente en el almacenamiento poscosecha de frutos de fresas. El resto de especies han sido poco exploradas desde el contexto de la maduración o manejo poscosecha, las investigaciones se han realizado en otras etapas del desarrollo del fruto (Lv et al., 2022; Montecchiarini et al., 2019).
10. Perspectivas a futuro
A través de la extensa literatura revisada, hemos resumido el papel de un gran número de genes y FT que desencadenan o suprimen la vía de señalización del ABA como el comienzo del proceso de maduración en berries. De igual forma, los genes y FT que se han vinculado a cambios en la composición de estos frutos como resultado de la maduración poscosecha. Es decir, degradación de la pared celular, pérdida de la firmeza y cambios en características de calidad como el color o el aroma. Todos los agentes de expresión génica presentados se han identificado a través del empleo de las ciencias ómicas como la transcriptómica, la proteómica y la metabolómica. No obstante, la transcriptómica y la metabolómica son las que destacan, al incluirse en una diversidad de estudios dirigidos a la comprensión de la maduración en berries.
La popularidad de la transcriptómica puede deberse a que es una de las ciencias ómicas con mayor accesibilidad tecnológica, lo que permite estudiar todos los genes activos en un momento y condiciones determinadas de forma rápida, precisa y cada vez más económica. Además, a diferencia de la proteómica y la metabolómica cuenta con un mayor número de bases de datos públicas, lo que facilita su análisis sin necesidad de generar datos nuevos. De este modo, dilucida las vías reguladoras del proceso de maduración, pero sin considerar los cambios postranscripcionales y postraduccionales.
Por su parte, la metabolómica, a pesar de sus complicaciones inherentes como la sensibilidad de las muestras y la diversidad química de las moléculas, es la ciencia ómica que evalúa a nivel funcional la expresión génica. A través de la transcriptómica podemos identificar la expresión génica, pero la metabolómica es quien garantiza la actividad bioquímica real. De esta manera, la integración transcriptómica-metabolómica genera una comprensión integral del proceso de maduración durante la etapa poscosecha. Esto a través de la identificación de los genes y su expresión, así como los productos finales de estos genes y sus interacciones en las vías metabólicas. Algo similar sucede con la integración transcriptómica-proteómica, en donde la proteómica revela las modificaciones postraduccionales que la transcriptómica no puede, permitiendo así evaluar la influencia funcional de la modificación de proteínas.
La mayoría de las funcionalidades biológicas son controladas por proteínas, por lo que es importante medir las alteraciones del proteoma durante los diferentes estadíos celulares de los frutos, y que de esta manera sea más clara la comprensión del proceso de maduración. A pesar de esto, la proteómica fue la ciencia ómica que presentó considerablemente un menor número de estudios acerca de la maduración poscosecha de berries. Esto no se observó exclusivamente en nuestro estudio, en algunos otros trabajos se ha reportado que, aunque la proteómica ha logrado avances considerables, está rezagada con respecto a otras ciencias ómicas en términos de cobertura general, costo y velocidad (Sun et al., 2024). Una de las posibles causas puede ser las múltiples modificaciones postraduccionales que dan lugar a una diversidad de isoformas para una proteína dada, complicando el análisis. A futuro, la superación de las limitaciones actuales en proteómica requerirá una combinación de mejoras tecnológicas, metodológicas y computacionales que permitan una detección más amplia y precisa de proteínas, incluso de aquellas de baja abundancia. Así como la consolidación de bases de datos proteómicos que mejoren la reproducibilidad y la comparabilidad entre estudios.
Finalmente, también se identificó una limitación en la abundancia de estudios acerca de la maduración poscosecha en frambuesa y zarzamoras. Destacando principalmente estudios en fresa y arándanos, lo cual se puede asociar a una cuestión socioeconómica y molecular. En cuanto a la cuestión socioeconómica, son las dos berries que se encuentran entre los cultivos frutales de mayor importancia económica del mundo. Su producción y exportación generan ingresos significativos y contribuyen a la fortaleza económica de los países productores, por lo que dirigir esfuerzos en mitigar las pérdidas poscosecha por maduración se vuelve un engranaje clave. En cuanto a la cuestión molecular, particularmente de la fresa, esta cuenta con un pariente cercano considerado un sistema modelo, Fragaria vesca la fresa silvestre. La razón de considerarse un sistema modelo es que posee un tamaño de genoma pequeño de aproximadamente 240 Mb, un ciclo de vida corto es relativamente sensible a la transformación y fácil de propagar. Facilitando de esta manera los estudios de descubrimiento de rasgos y la funcionalización de genes. Sin embargo, dado el creciente auge del consumo de alimentos funcionales y nutracéuticos, aunado al aumento de los costos de producción agrícola, surgirá la necesidad de mejorar los niveles de abastecimiento de frambuesas y zarzamoras como del resto de berries. Esto se puede lograr mediante la disminución de las pérdidas poscosecha derivadas de la maduración durante la cadena de suministro. Una de las principales ventajas, es que las berries comparten relaciones filogenéticas, lo que implica que comparten numerosos genes y rutas metabólicas similares, lo que hace que los descubrimientos en fresa sean fácilmente extrapolables o comparables a otras especies.
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
11. Conclusión
La aplicación de las ciencias ómicas en el periodo poscosecha de berries ha permitido generar avances significativos en la comprensión de los procesos moleculares involucrados en la maduración de los frutos. Los datos generados permitieron identificar al ABA como la hormona clave que coordina la vía de señalización responsable de la maduración poscosecha. También identificaron la contribución de una serie de genes y FT codificantes para múltiples enzimas y metabolitos secundarios como antocianinas, compuestos fenólicos y compuestos volátiles, los cuales cambian a través del proceso de maduración poscosecha e influyen directamente en las características de calidad y vida útil. Destacándose el grupo de genes NCED y MADS, así como los FT MYB, WRKY y TCP como codificantes de enzimas pectinasas degradadoras de la pared celular principalmente. Además de las moléculas reportadas hasta el momento, se sospecha que existen muchos otros actores por identificar, y que, a diferencia de los métodos tradicionales, las ciencias ómicas permitirán un mayor alcance en análisis múltiples y coordinados. Hasta el momento, la transcriptómica y la metabolómica han avanzado en gran medida en comparación con la proteómica, por lo que dirigir esfuerzos en el desarrollo de esta ciencia ómica se vuelve un desafío futuro.
Bibliografía
Álvarez, F., Moya, M., Rivera Mora, C., Zúñiga, P. E., Jara Cornejo, K., Muñoz, P., Ayala Raso, A., Munné Bosch, S., Figueroa, C. R., Figueroa, N. E., Valdenegro, M., Álvaro, J. E., Shwab, W., Defilippi, B. G. & Fuentes, L. (2023). Abscisic acid synthesis and signaling during the ripening of raspberry (Rubus idaeus ‘Heritage’) fruit. Plants, 12(9), 1882. https://doi.org/10.3390/plants12091882
Ban, Z., Yan, J., Wang, Y., Zhang, J., Yuan, Q., & Li, L. (2018). Effects of postharvest application of chitosan-based layer-by-layer assemblies on regulation of ribosomal and defense proteins in strawberry fruit (Fragaria× ananassa). Scientia horticulturae, 240, 293-302. https://doi.org/10.1016/j.scienta.2018.06.035
Belay, Z. A., & Caleb, O. J. (2022). Role of integrated omics in unravelling fruit stress and defence responses during postharvest: A review. Food Chemistry: Molecular Sciences, 5, 100118. https://doi.org/10.1016/j.fochms.2022.100118
Bernales, M., Monsalve, L., Ayala Raso, A., Valdenegro, M., Martínez, J. P., Travisany, D., Defilippi, B., Gónzalez Aguero, M., Cherian, S. & Fuentes, L. (2019). Expression of two indole-3-acetic acid (IAA)-amido synthetase (GH3) genes during fruit development of raspberry (Rubus idaeus Heritage). Scientia horticulturae, 246, 168-175. https://doi.org/10.1016/j.scienta.2018.09.077
Brizzolara, S., Manganaris, G. A., Fotopoulos, V., Watkins, C. B., & Tonutti, P. (2020). Primary metabolism in fresh fruits during storage. Frontiers in plant science, 11, 80. https://doi.org/10.3389/fpls.2020.00080
Castro, R. I., Vásquez Rojas, C., Cortiella, M. G. I., Parra Palma, C., Ramos, P., & Morales Quintana, L. (2022). Evolution of the volatile organic compounds, phenols and
antioxidant capacity during fruit ripening and development of Rubus ulmifolius Schott fruits. Horticulturae, 9(1), 13. https://doi.org/10.3390/horticulturae9010013
Chen, C., Zhang, X., Zhang, H., Ban, Z., Li, L., Dong, C., Ji, H. & Xue, W. (2019). Label-free quantitative proteomics to investigate the response of strawberry fruit after controlled ozone treatment. RSC advances, 9(2), 676-689. https://doi.org/10.1039/c8ra08405j
Chen, R., Mao, L., Guan, W., Wei, X., Huang, Z., & Wu, Y. (2022). ABA-mediated miR5290 promotes anthocyanin biosynthesis by inhibiting the expression of FaMADS1 in postharvest strawberry fruit. Postharvest Biology and Technology, 189, 111934. https://doi.org/10.1016/j.postharvbio.2022.111934
Cherian, S., Figueroa, C. R., & Nair, H. (2014). ‘Movers and shakers’in the regulation of fruit ripening: a cross-dissection of climacteric versus non-climacteric fruit. Journal of Experimental Botany, 65(17), 4705-4722. https://doi.org/10.1093/jxb/eru280
Chizk, T. M., Clark, J. R., Johns, C., Nelson, L., Ashrafi, H., Aryal, R., & Worthington, M. L. (2023). Genome-wide association identifies key loci controlling blackberry postharvest quality. Frontiers in Plant Science, 14, 1182790. https://doi.org/10.3389/fpls.2023.1182790
Dincheva, I. V. A. Y. L. A., Badjakov, I. L. I. A. N., Kondakova, V. I. O. L. E. T. A., & Batchvarova, R. O. S. I. T. S. A. (2013). Metabolic profiling of red raspberry (Rubus idaeus) during fruit development and ripening. Int. J. Agric. Sci. Res, 3, 81-88.
Dumitrașcu, L., Banu, I., Patraşcu, L., Vasilean, I., & Aprodu, I. (2024). The Influence of Processing on the Bioactive Compounds of Small Berries. Applied Sciences, 14(19), 8713. https://doi.org/10.3390/app14198713
Eichholz, I., Huyskens Keil, S., & Rohn, S. (2015). Blueberry phenolic compounds: fruit maturation, ripening and post-harvest effects. In Processing and impact on active components in food (pp. 173-180). Academic press. https://doi.org/10.1016/B978-012-404699-3.00021-4
Farneti, B., Khomenko, I., Ajelli, M., Emanuelli, F., Biasioli, F., & Giongo, L. (2022). Ethylene production affects blueberry fruit texture and storability. Frontiers in Plant Science, 13, 813863. https://doi.org/10.3389/fpls.2022.813863
Foster, T. M., Bassil, N. V., Dossett, M., Leigh Worthington, M., & Graham, J. (2019). Genetic and genomic resources for Rubus breeding: a roadmap for the future. Horticulture research, 6. https://doi.org/10.1038/s41438-019-0199-2
Golovinskaia, O., & Wang, C. K. (2021). Review of functional and pharmacological activities of berries. Molecules, 26(13), 3904. https://doi.org/10.3390/molecules26133904
Habibi, F., Boakye, D. A., Chang, Y., Casorzo, G., Hallman, L. M., Madison, M., Herrera, J. C., Sarkhosh, A. & Liu, T. (2024). Molecular mechanisms underlying postharvest physiology and metabolism of fruit and vegetables through multi- omics technologies. Scientia Horticulturae, 324, 112562. https://doi.org/10.1016/j.scienta.2023.112562
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
Ji, Y., Hu, W., Xiu, Z., Yang, X., & Guan, Y. (2023). Integrated transcriptomics-proteomics analysis reveals the regulatory network of ethanol vapor on softening of postharvest blueberry. Lwt, 180, 114649. https://doi.org/10.1016/j.lwt.2023.114649
Karppinen, K., Hirvelä, E., Nevala, T., Sipari, N., Suokas, M., & Jaakola, L. (2013). Changes in the abscisic acid levels and related gene expression during fruit development and ripening in bilberry (Vaccinium myrtillus L.). Phytochemistry, 95, 127-134. https://doi.org/10.1016/j.phytochem.2013.06.023
Karppinen, K., Tegelberg, P., Häggman, H., & Jaakola, L. (2018). Abscisic acid regulates anthocyanin biosynthesis and gene expression associated with cell wall modification in ripening bilberry (Vaccinium myrtillus L.) fruits. Frontiers in plant science, 9, 1259. https://doi.org/10.3389/fpls.2018.01259
Kim, D. S., Park, K. J., Choi, J. H., Lim, J. H., & Kim, H. J. (2023). Metabolomic analysis of strawberries at different maturities according to postharvest storage period. Scientia Horticulturae, 321, 112283. https://doi.org/10.1016/j.scienta.2023.112283
Kim, M. J., Lee, M. Y., Shon, J. C., Kwon, Y. S., Liu, K. H., Lee, C. H., & Ku, K. M. (2019). Untargeted and targeted metabolomics analyses of blackberries–understanding postharvest red drupelet disorder. Food chemistry, 300, 125169. https://doi.org/10.1016/j.foodchem.2019.125169
Li, B. J., Grierson, D., Shi, Y., & Chen, K. S. (2022). Roles of abscisic acid in regulating ripening and quality of strawberry, a model non-climacteric fruit. Horticulture research, 9, uhac089. https://doi.org/10.1093/hora/uhac089
Li, L., Song, J., Kalt, W., Forney, C., Tsao, R., Pinto, D., Chisholm, K., Campbell, L., Fillmore, S., & Li, X. (2013). Quantitative proteomic investigation employing stable isotope labeling by peptide dimethylation on proteins of strawberry fruit at different ripening stages. Journal of proteomics, 94, 219-239. https://doi.org/10.1016/j.jprot.2013.09.004
Li, L., Li, D., Luo, Z., Huang, X., & Li, X. (2016). Proteomic response and quality maintenance in postharvest fruit of strawberry (Fragaria× ananassa) to exogenous cytokinin. Scientific Reports, 6(1), 27094. https://doi.org/10.1038/srep27094
Li, S., Zhao, Y., Wu, P., Grierson, D., & Gao, L. (2024). Ripening and rot: How ripening processes influence disease susceptibility in fleshy fruits. Journal of Integrative Plant Biology, 66(9), 1831-1863. https://doi.org/10.1111/jipb.13739
Li, T., Guo, X., Chen, Y., Li, J., Yu, C., Guo, Z., & Yang, G. (2024). Overexpression of the Rubus idaeus Polygalacturonases Gene RiPG2 Accelerates Fruit Softening in Solanum lycopersicum. Agronomy, 14(1), 160. https://doi.org/10.3390/agronomy14010160
Liu, H., Wang, X., Lyu, L., He, J., Wu, W., & Li, W. (2024). Two endo-1, 4-β-glucanase gene family members from blackberry reveals divergent regulation during fruit ripening. Scientia Horticulturae, 333, 113256. https://doi.org/10.1016/j.scienta.2024.113256
Liu, R., Fanzhen, S., Niu, B., Wu, W., Han, Y., Chen, H., & Gao, H. (2023). Melatonin treatment delays the softening of blueberry fruit by modulating cuticular wax metabolism and
reducing cell wall degradation. Food Research International, 173, 113357. https://doi.org/10.1016/j.foodres.2023.113357
López Casado, G., Sánchez Raya, C., Ric Varas, P. D., Paniagua, C., Blanco Portales, R., Muñoz Blanco, J., Pose, S., Matas, A.J. & Mercado, J. A. (2023). CRISPR/Cas9 editing of the polygalacturonase FaPG1 gene improves strawberry fruit firmness. Horticulture research, 10(3), uhad011. https://doi.org/10.1093/hr/uhad011
Lv, J., Zheng, T., Song, Z., Pervaiz, T., Dong, T., Zhang, Y., Jia, H. & Fang, J. (2022). Strawberry proteome responses to controlled hot and cold stress partly mimic post-harvest storage temperature effects on fruit quality. Frontiers in Nutrition, 8, 812666. https://doi.org/10.3389/fnut.2021.812666
Martín Pizarro, C., Vallarino, J. G., Osorio, S., Meco, V., Urrutia, M., Pillet, J., Casañal, A., Merchante, C., Amaya, I., Willmitzer, L., Fernie A.R., Giovannoni, J.J., Botella, M.A., Valpuesta, V. & Posé, D. (2021). The NAC transcription factor FaRIF controls fruit ripening in strawberry. The Plant Cell, 33(5), 1574-1593. https://doi.org/10.1093/plcell/koab070
Martínez Camacho, J. E., Guevara González, R. G., Rico García, E., Tovar Pérez, E. G., & Torres Pacheco, I. (2022). Delayed senescence and marketability index preservation of blackberry fruit by preharvest application of chitosan and salicylic acid. Frontiers in Plant Science, 13, 796393. https://doi.org/10.3389/fpls.2022.796393
Medina Puche, L., Blanco Portales, R., Molina Hidalgo, F. J., Cumplido Laso, G., García Caparrós, N., Moyano Cañete, E., et al. (2016). Extensive transcriptomic studies on the roles played by abscisic acid and auxins in the development and ripening of strawberry fruits. Funct. Integr. Genomics 16, 671–692. https://doi.org/10.1007/s10142-0160510-3
Monsalve, L., Bernales, M., Ayala Raso, A., Álvarez, F., Valdenegro, M., Alvaro, J. M., Alvaro, J., Figueroa, C., Defilippi, B. & Fuentes, L. (2022). Relationship between endogenous ethylene production and firmness during the ripening and cold storage of raspberry (Rubus idaeus ‘Heritage’) Fruit. Horticulturae, 8(3), 262. https://doi.org/10.3390/horticulturae8030262
Montecchiarini, M. L., Margarit, E., Morales, L., Rivadeneira, M. F., Bello, F., Gollán, A., Vázquez, D., Podestá, F. E., & Tripodi, K. E. J. (2019). Proteomic and metabolomic approaches unveil relevant biochemical changes in carbohydrate and cell wall metabolisms of two blueberry (Vaccinium corymbosum) varieties with different quality attributes. Plant physiology and biochemistry : PPB, 136, 230–244.
Moya León, M. A., Mattus Araya, E., & Herrera, R. (2019). Molecular events occurring during softening of strawberry fruit. Frontiers in Plant Science, 10, 615. https://doi.org/10.3389/fpls.2019.00615
Moya León, M. A., Stappung, Y., Mattus Araya, E., & Herrera, R. (2023). Insights into the genes involved in ABA biosynthesis and perception during development and ripening of the
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries
Chilean strawberry fruit. International Journal of Molecular Sciences, 24(10), 8531. https://doi.org/10.3390/ijms24108531
Nguyen, N., Bergmann, U., Jaakola, L., Häggman, H., Jokipii-Lukkari, S., & Toth, K. (2024). Bilberry metabolomic and proteomic profiling during fruit ripening reveals key dynamics affecting fruit quality. Physiologia plantarum, 176(5), e14534. https://doi.org/10.1111/ppl.14534
Organización de las Naciones Unidas para la Alimentación y la Agricultura (FAO). (2023). Base de datos sobre pérdida y desperdicio de alimentos. Recuperado de https://www.fao.org/platform-food-loss-waste/flw-data/es
Organización de las Naciones Unidas para la Alimentación y la Agricultura (FAO). (2023). FAOSTAT. Base de datos de productos por país. Recuperado de https://www.fao.org/faostat/es/#rankings/countries_by_commodity_exports
Perotti, M. F., Posé, D., & Martín Pizarro, C. (2023). Non-climacteric fruit development and ripening regulation:‘the phytohormones show’. Journal of Experimental Botany, 74(20), 6237-6253. https://doi.org/10.1093/jxb/erad271
Sánchez Gómez, C., Posé, D., & Martín Pizarro, C. (2022). Insights into transcription factors controlling strawberry fruit development and ripening. Frontiers in Plant Science, 13, 1022369. https://doi.org/10.3389/fpls.2022.1022369
Secretaría de Agricultura y Desarrollo Rural. (2023). Cierre agrícola. Gobierno de México. http://nube.agricultura.gob.mx/cierre_agricola/
Servicio de Información Agroalimentaria y Pesquera (SIAP). (2023). Cierre agrícola. Gobierno de México. Recuperado de http://nube.agricultura.gob.mx/cierre_agricola/
Siebeneichler, T. J., Crizel, R. L., Camozatto, G. H., Paim, B. T., da Silva Messias, R., Rombaldi, C. V., & Galli, V. (2020). The postharvest ripening of strawberry fruits induced by abscisic acid and sucrose differs from their in vivo ripening. Food chemistry, 317, 126407. https://doi.org/10.1016/j.foodchem.2020.126407
Song, X., Dai, H., Wang, S., Ji, S., Zhou, X., Li, J., & Zhou, Q. (2022). Putrescine treatment delayed the softening of postharvest blueberry fruit by inhibiting the expression of cell wall metabolism key gene VcPG1. Plants, 11(10), 1356. https://doi.org/10.3390/plants11101356
Sun, B. B., Suhre, K., & Gibson, B. W. (2024). Promises and challenges of populational proteomics in health and disease. Molecular & Cellular Proteomics, 23(7). https://doi.org/10.1016/j.mcpro.2024.100786
Travisany, D., Ayala Raso, A., Di Genova, A., Monsalve, L., Bernales, M., Martínez, J. P., González, M., Defilippi, B., Cherian, S., Maass, A., & Fuentes, L. (2019). RNA-Seq analysis and transcriptome assembly of raspberry fruit (Rubus idaeus Heritage) revealed several candidate genes involved in fruit development and ripening. Scientia Horticulturae, 254, 26-34. https://doi.org/10.1016/j.scienta.2019.04.018
www.bibliotecahorticultura.com
Vallarino, J. G., Merchante, C., Sánchez Sevilla, J. F., de Luis Balaguer, M. A., Pott, D. M., Ariza, M. T., Casañal, A., Posé, D., Vioque, A., Amaya, I., Willmitzer, L. Solano, R., Sozzani, R., Fernie, A.R., Botella, M.A., Giovannoni, J.J., Valpuesta, V. & Osorio, S. (2020). Characterizing the involvement of FaMADS9 in the regulation of strawberry fruit receptacle development. Plant Biotechnology Journal, 18(4), 929-943. https://doi.org/10.1111/pbi.13257
Waikar, B. A., & Mandave, P. C. (2023). Berries: A New Paradigm for Nutraceuticals. https://doi.org/10.5772/intechopen.1002226
Wang, S., Zhou, Q., Zhou, X., Zhang, F., & Ji, S. (2020). Ethylene plays an important role in the softening and sucrose metabolism of blueberries postharvest. Food Chemistry, 310, 125965.Edible Berries-New Insights. https://doi.org/10.1016/j.foodchem.2019.125965
Wang, Y., Guan, J., & Zhang, Q. (2024). Chromosome-scale genome, together with transcriptome and metabolome, provides insights into the evolution and anthocyanin biosynthesis of Rubus rosaefolius Sm.(Rosaceae). Horticulture Research, 11(4), uhae064. https://doi.org/10.1093/hr/uhae064
Wu, W., Cao, S. F., Shi, L. Y., Chen, W., Yin, X. R., & Yang, Z. F. (2023). Abscisic acid biosynthesis, metabolism and signaling in ripening fruit. Frontiers in Plant Science, 14, 1279031. https://doi.org/10.3389/fpls.2023.1279031
Xie, Y. G., Ma, Y. Y., Bi, P. P., Wei, W., Liu, J., Hu, Y., Gou, Y. J., Zhu, D., Wen, Y. Q. & Feng, J. Y. (2020). Transcription factor FvTCP9 promotes strawberry fruit ripening by regulating the biosynthesis of abscisic acid and anthocyanins. Plant Physiology and Biochemistry, 146, 374-383. https://doi.org/10.1016/j.plaphy.2019.11.004
Xu, L., Chen, X., Wang, Q., Zhao, M., Qiao, Y., Xie, Z., Sun, M., & Cai, W. (2024). Metabolomic and Transcriptomic Analysis Revealed the Maturation Mechanism of White-Fleshed Strawberry. Agronomy, 14(12), 2860. https://doi.org/10.3390/agronomy14122860
Yang, H., Wu, Y., Wu, W., Lyu, L., & Li, W. (2021). Transcriptomic analysis of blackberry plant (Rubus spp.) reveals a comprehensive metabolic network involved in fruit ripening process. Biologia, 1-14. https://doi.org/10.1007/s11756-021-00896-6
Yang, H., Han, T., Wu, Y., Lyu, L., Wu, W., & Li, W. (2023). Quality analysis and metabolomic profiling of the effects of exogenous abscisic acid on rabbiteye blueberry. Frontiers in Plant Science, 14, 1224245. https://doi.org/10.3389/fpls.2023.1224245
Yang, M., He, C., She, M., Hou, G., Jiang, Y., Peng, Y., M, Ella., Q Chen., M, Li., Y, Zhang., Y, Lin., Y, Zhang., Y, Wang., W, He., X, Wang., H Tang., & Luo, Y. (2024). Genome-wide identification and a comparative transcriptomics approach reveal FaSAD3 as a strawberry fruit ripening regulator. Scientia Horticulturae, 325, 112702. https://doi.org/10.1016/j.scienta.2023.112702
Yuan, F., Yan, J., Yan, X., Liu, H., & Pan, S. (2020). Comparative transcriptome analysis of genes involved in volatile compound synthesis in blueberries (Vaccinium virgatum) during postharvest storage. Postharvest Biology and Technology, 170, 111327. https://doi.org/10.1016/j.postharvbio.2020.111327
Zhang, C., Xiong, Z., Yang, H., & Wu, W. (2019). Changes in pericarp morphology, physiology and cell wall composition account for flesh firmness during the ripening of blackberry (Rubus spp.) fruit. Scientia Horticulturae, 250, 59-68. https://doi.org/10.1016/j.scienta.2019.02.015
Zhang, C., Xiong, Z., Lyu, L., Li, W., & Wu, W. (2023). Overexpression of blackberry RuEG6 reduces the leaf cellulose content in tobacco. Brazilian Journal of Botany, 46(1), 27-33. https://doi.org/10.1007/s40415-022-00856-7
Zhang, C., Wu, Y., Xiong, Z., Li, W., & Wu, W. (2021). ABA accelerates blackberry (Rubus spp.) fruit ripening by positively affecting ripening-related gene expression and metabolite profiles. Journal of Berry Research, 11(4), 705-720. https://doi.org/10.3233/JBR210725
Zhang, S., Wu, Y., Huang, X., Wu, W., Lyu, L., & Li, W. (2024). AP2 family identification in blackberry reveals the fruit ripening/color-change-related expression of RuAP2-1 and RuAP2-6 targeted by miR172. Trees, 38(2), 393-407. https://doi.org/10.1007/s00468024-02489-7
Zhang, W. W., Zhao, S. Q., Gu, S., Cao, X. Y., Zhang, Y., Niu, J. F., Liu, L., Ran Li, A., Suo Jia, W., Xiu Qi, B. & Xing, Y. (2022). FvWRKY48 binds to the pectate lyase FvPLA promoter to control fruit softening in Fragaria vesca. Plant Physiology, 189(2), 1037-1049. https://doi.org/10.1093/plphys/kiac091
Zhao, M., Hu, R., Lin, Y., Yang, Y., Chen, Q., Li, M., Zhang, Y., ZhangM Y., Wang, Y., He, W., Wang, X., Tang, H. & Luo, Y. (2024). Genome-Wide Analysis of Polygalacturonase Gene Family Reveals Its Role in Strawberry Softening. Plants, 13(13), 1838. https://doi.org/10.3390/plants13131838
Zheng, D., & Hrazdina, G. (2010). Cloning and characterization of an expansin gene, RiEXP1, and a 1-aminocyclopropane-1-carboxylic acid synthase gene, RiACS1 in ripening fruit of raspberry (Rubus idaeus L.). Plant Science, 179(1-2), 133-139. https://doi.org/10.1016/j.plantsci.2010.04.001
Zhou, Q., Zhang, F., Ji, S., Dai, H., Zhou, X., Wei, B., Cheng, S. & Wang, A. (2021). Abscisic acid accelerates postharvest blueberry fruit softening by promoting cell wall metabolism. Scientia Horticulturae, 288, 110325. https://doi.org/10.1016/j.scienta.2021.110325
Aplicación de las ciencias ómicas para la comprensión de la maduración poscosecha en berries www.bibliotecahorticultura.com
ESPECIALISTES EN SERVEIS PER A LA PRODUCCIÓ EDITORIAL, SL
Doctor Manuel Candela 26, 11ª 46021 VALENCIA – ESPAÑA
Tel.: +34-649 48 56 77 / info@poscosecha.com NIF: B-43458744
www.poscosecha.com www.postharvest.biz www.bibliotecahorticultura.com www.tecnologiahorticola.com www.actualfruveg.com