Rota+Coli+Clos

PRESENTACIONES
5 DOSIS
25 DOSIS
TRIPLE PROTECCIÓN EN CADA DOSIS
EXCELENTE PERFIL DE SEGURIDAD
La sanidad en producción porcina no es un estado, es un EQUILIBRIO.
Un equilibrio dinámico, en constante ajuste entre el animal, los microorganismos y el entorno. No se alcanza de forma definitiva, sino que se construye cada día, en cada decisión, en cada manejo, en cada protocolo aplicado en la granja.
Durante años, se ha abordado la patología desde una lógica casi lineal: un agente, una enfermedad, una solución. Sin embargo, la realidad productiva ha ido desmontando esa simplificación.
Hoy sabemos que los procesos sanitarios más relevantes rara vez responden a una única causa. Son el resultado de interacciones complejas, de sinergias, de pequeños desequilibrios que, acumulados, terminan por hacerse visibles.
Ahí es donde empieza la patología.
No en los signos clínicos, sino en los cambios previos: en la inmunidad que se debilita, en el estrés que se acumula, en la microbiota que se altera, en el manejo que deja de ser óptimo. Es en ese espacio, muchas veces silencioso, donde se define el curso de la enfermedad… y también nuestra capacidad de anticipación.
Anticiparse ya no significa solo actuar antes, significa entender mejor.
Entender que la sanidad no puede desligarse de la rentabilidad, ni del bienestar animal, ni del impacto ambiental. Que cada decisión sanitaria tiene consecuencias que van más allá de lo clínico. El futuro del sector pasa por integrar todas estas dimensiones en un mismo enfoque.
En este contexto, la lucha contra las resistencias antimicrobianas marca un punto de inflexión. No solo como limitación en el uso de antibióticos, sino como impulso hacia modelos más precisos, más sostenibles y mejor fundamentados.
Esto implica cambiar el foco: pasar de la reacción a la prevención, del tratamiento al diagnóstico.
Nunca se ha dispuesto de tantas herramientas diagnósticas como en la actualidad. Técnicas que permiten detectar procesos subclínicos, caracterizar patógenos y tomar decisiones basadas en datos. Pero su verdadero valor no está en la tecnología, sino en su interpretación.
Diagnosticar no es solo identificar, es decidir.
Para decidir mejor, es imprescindible avanzar juntos. Veterinarios, ganaderos, técnicos, industria y administración forman parte de un mismo sistema. Remar en la misma dirección no es una opción, sino una necesidad para afrontar desafíos que ningún actor puede resolver por separado.
En paralelo, el bienestar animal se consolida como un pilar esencial. No solo por una demanda social creciente, sino porque impacta directamente en la sanidad y en la eficiencia productiva.
Un animal menos estresado es un animal más resiliente. Y un sistema más resiliente es, inevitablemente, más competitivo.
Esta edición especial de Patología se sitúa en ese punto de encuentro: el de una sanidad que evoluciona, que incorpora conocimiento y que se apoya en la ciencia para tomar mejores decisiones.
Porque en producción porcina, la sanidad no es solo ausencia de enfermedad, es la capacidad de mantener el equilibrio cuando todo está en movimiento.
La dirección de la revista no se hace responsable de las opiniones de los autores. Todos los derechos reservados. Imágenes: Noun Project/Freepik/Dreamstime/BioRender
EDITOR GRUPO DE COMUNICACIÓN AGRINEWS S.L.
PUBLICIDAD
Laura Muñoz
+34 629 42 25 52 laura@mediatarsis.com
Luis Carrasco +34 605 09 05 13 lc@agrinews.es
REDACCIÓN
Daniela Morales
ADMINISTRACIÓN
Mercè Soler
Barcelona
España
Tel: +34 93 115 44 15 info@agrinews.es www.porcinews.com www.porcinews.com/revistaporcisapiens/
Precio de suscripción anual: España 45 € Extranjero 180 €
ISSN (Revista impresa) 2696-8142
ISSN (Revista digital) 2696-8151
DIRIGIDA A VETERINARIOS DE PORCINO
Depósito Legal PorciSapiens B 7620-2021
Revista Cuatrimestral
4/11
LA COOPERACIÓN MICROBIANA DETRÁS DEL COMPLEJO RESPIRATORIO PORCINO
Ana I. Pastor Calonge, Oscar Mencía-Ares, Alejandro Cid González, Mario Delgado García, César B. Gutiérrez Martín y Sonia Martínez Martínez Grupo BACRESPI. Departamento de Sanidad Animal, Universidad de León
Interacciones microbianas en el Complejo Respiratorio Porcino que influyen en la gravedad, persistencia y respuesta a tratamientos.
Servicios Técnicos de Porcino Zoetis 12/18
20/31
¿POR QUÉ SE INCREMENTAN LOS PROBLEMAS DE MYCOPLASMA HYOPNEUMONIAE?
J. Abadías, C. Farré, J. Hernández y E. Maiques
ADHESIÓN INTESTINAL DE E. COLI ETEC F18 Y APARICIÓN TEMPRANA DE ENFERMEDAD EN LECHONES DESTETADOS
Elizabeth M. Due1, Kayla A. Miller1, Eric R. Burrough2, Emma T. Helm3 y Nicholas K. Gabler1
1Departamento de Ciencia Animal, Universidad Estatal de Iowa
2Departamento de Medicina Veterinaria Diagnóstica y de Animales de Producción, Universidad Estatal de Iowa
3Facultad de Ciencias Animales, Instituto Politécnico y Universidad Estatal de Virginia
Interacción temprana de E. coli ETEC F18 con el epitelio intestinal de los lechones y su papel en la diarrea postdestete
32/34
RESISTENCIA GENÉTICA AL E. COLI F18 EN CERDOS: UN ESTUDIO REVELADOR
Rodrigo C. Paiva1 , Marcelo N. Almeida1 y Lucina Galina Pantoja2
1Universidad Estatal de Iowa
2PIC
36/45
PURINES PORCINOS Y RESISTENCIAS ANTIMICROBIANAS: UNA REVISIÓN APLICADA DESDE EL PROYECTO PURIBIOTIC
Mª Jesús Serrano Andrés, María Mei Martínez de Zuazo, Rafael Pagán Tomás y Laura María Espina Cadena
Departamento de Producción Animal y Ciencia de los Alimentos. Universidad de Zaragoza. Instituto Agroalimentario de Aragón IA2
Análisis del papel de los purines porcinos en la dinámica ambiental de resistencias antimicrobianas desde una perspectiva aplicada.
46/50
EFECTO DE LA VACUNACIÓN ORAL SOBRE EL RENDIMIENTO DE LECHONES INFECTADOS CON SALMONELLA TYPHIMURIUM SIN SIGNOS CLÍNICOS EVIDENTES
Ceva Salud Animal
52/61
CONTROL DE STREPTOCOCCUS
SUIS EN TIEMPOS DE RESTRICCIÓN ANTIBIÓTICA
Dr. Marcelo Gottschalk
Profesor del Departamento de Patología y Microbiología, Facultad de Veterinaria Universidad de Montreal
Diagnóstico, factores predisponentes y estrategias integrales para reducir el impacto sanitario de Streptococcus suis en porcino.
62/68
CLAVES PARA PROTEGER LA RENTABILIDAD DE LA PRODUCCIÓN PORCINA EN TIEMPOS DE CRISIS
Jesús Bollo Bernabé y Alfredo Romero Rodriguez Departamento de Marketing de MSD Animal Health
70/80
BACTERIÓFAGOS Y ESTRATEGIAS
COMBINADAS: NUEVOS ALIADOS FRENTE A LA RESISTENCIA ANTIMICROBIANA EN PORCINO
Mario Delgado-García1 , Sonia MartínezMartínez1 , Sandra Sevilla-Navarro2, Zaida Carratalá-Parra2, Ana Isabel Pastor-Calonge1 , Alejandro Cid-González1 , César GutiérrezMartín1 y Óscar Mencía-Ares1 1Grupo BACRESPI, Departamento de Sanidad Animal, Universidad de León 2Centro de Calidad Avícola y Alimentación Animal de la Comunidad Valenciana (CECAV)
Uso de bacteriófagos en combinación con otras estrategias para optimizar el control bacteriano y reducir resistencias en porcino.
Agradecemos a nuestros anunciantes por hacer posible la publicación de esta revista: Boehringer Ingelheim Animal Health España, Ceva Salud Animal, MSD Animal Health, PIC, Vetia Animal Health, Vetoquinol y Zoetis.
l estudio de las enfermedades respiratorias en porcino ha evolucionado desde una visión centrada en patógenos individuales hacia un enfoque que considera las complejas interacciones entre microorganismos dentro del propio hospedador. En este contexto, el análisis de la comunidad microbiana respiratoria y sus mecanismos de cooperación permite comprender mejor por qué determinados procesos infecciosos se agravan, se cronifican o responden de forma diferente a los tratamientos en las granjas porcinas.


Descarga el PDF
Ana I. Pastor Calonge, Oscar Mencía-Ares, Alejandro Cid González, Mario Delgado García, César B. Gutiérrez Martín y Sonia Martínez Martínez
Grupo BACRESPI. Departamento de Sanidad Animal, Universidad de León
El Complejo Respiratorio Porcino (CRP) es un síndrome multifactorial en el que las interacciones de varios patógenos son muy habituales y cuya acción viene propiciada por factores ambientales o genéticos.
Más que constituido por patógenos individuales actuando de forma aislada, el CRP suele surgir de interacciones entre patógenos primarios y una amplia gama de agentes secundarios u oportunistas (Figura 1).
Los patógenos primarios inician la infección y con frecuencia inducen inmunosupresión.
Los patógenos secundarios aprovechan este entorno alterado del hospedador y son los que a menudo acaban provocando una enfermedad grave.
Mesomycoplasma hyopneumoniae
PCV2
Pasteurella multocida Streptococcus suis
Coronavirus respiratorio porcino
Bocavirus porcino
Virus torque teno porcino
Citomegalovirus porcino
Parvovirus porcino tipo 2 y tipo 3
Neumovirus ortoneumónico porcino
PRRSV Virus de la gripe A porcina
Actinobacillus pleuropneumoniae
Bordetella bronchiseptica Glaesserella parasuis
Mesomycoplasma hyorhinis
Virus Getah
Circovirus porcino tipo 3
Virus parainfluenza porcino tipo 1
Respirovirus porcino tipo 1 Actinobacillus suis
Patógenos primarios
Patógenos secundarios clásicos
Patógenos secundarios emergentes y reemergentes
Dada la amplitud y complejidad del cuadro clínico, el CRP puede estar desencadenado por una amplia diversidad de patógenos.
Los principales microorganismos asociados al CRP incluyen:
Bacterias: Mesomycoplasma hyopneumoniae (anteriormente conocido como Mycoplasma hyopneumoniae) y Actinobacillus pleuropneumoniae.
Virus: virus del síndrome reproductivo y respiratorio porcino (PRRSV), el circovirus porcino tipo 2 (PCV2) y el virus de la gripe A porcina.
Gracias al éxito del programa oficial de erradicación en España, la mayoría de las granjas están libres del virus de Aujeszky, por lo que en nuestro país no se considera actualmente como un patógeno primario, pero en otros países sí es considerado relevante.
1
Visualización gráfica donde se representa los patógenos implicados en el Complejo Respiratorio Porcino.


Los patógenos secundarios más establecidos y endémicos en el CRP incluyen:
Pasteurella multocida
Glaesserella parasuis
Bordetella bronchiseptica
Streptococcus suis
Más allá de estos patógenos secundarios más clásicos del CRP, en la actualidad están cobrando atención nuevos agentes por su reciente detección o reemergencia en las poblaciones porcinas y potencial relación con el CRP.
Entre los patógenos virales se incluyen el citomegalovirus porcino, el coronavirus respiratorio porcino o el virus parainfluenza porcino tipo 1, mientras que, en el ámbito bacteriano, agentes como Actinobacillus suis y Mesomycoplasma hyorhinis están adquiriendo mayor relevancia.
Su frecuente detección reciente en casos de CRP sugiere que podrían estar ayudando a modular la respuesta inmunitaria o interactuando con patógenos ya establecidos, aunque queda mucho por saber sobre su papel en este síndrome.
Probablemente, esta actual detección se deba a una mayor sensibilidad diagnóstica y vigilancia epidemiológica o por la propia evolución de la ecología de los patógenos dentro de los sistemas de producción intensiva.
COINFECCIÓN FRENTE A SUPERINFECCIÓN
Una distinción clave en la investigación del CRP es la diferencia entre coinfección y superinfección:
La coinfección se refiere a la presencia simultánea de múltiples patógenos en el hospedador.
La superinfección describe un proceso secuencial en el que una infección inicial altera el entorno del hospedador, permitiendo el establecimiento y la proliferación de patógenos posteriores.
Aunque el término coinfección se utiliza cada vez más para abarcar también a la superinfección, reconocer el momento temporal de cada infección sigue siendo importante para determinar el diagnóstico y abordar el tratamiento, pronóstico y medidas de prevención (Saade et al., 2020).
SECUENCIAS DE INFECCIÓN EN EL COMPLEJO RESPIRATORIO PORCINO
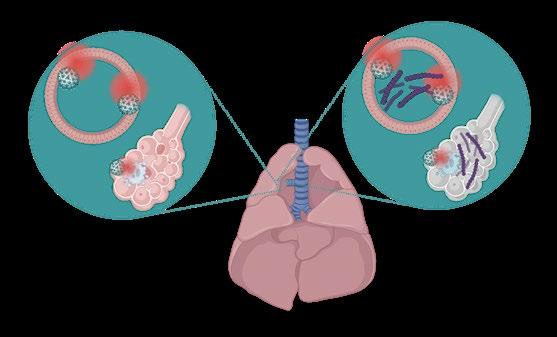
El escenario más comúnmente descrito en el CRP implica una infección viral que compromete las defensas respiratorias, seguida de un sobrecrecimiento bacteriano.
Los virus dañan el aparato mucociliar y alteran la función de los macrófagos alveolares, debilitando la inmunidad del hospedador y creando el entorno adecuado para bacterias oportunistas.
Las bacterias activan posteriormente vías inflamatorias que amplifican el daño tisular y agravan los signos clínicos (Nuñez-Anita et al., 2023).
1 2
FIGURA 2
El desarrollo del CRP suele comenzar con la entrada de virus respiratorios que alteran los mecanismos de defensa del aparato respiratorio, afectando el sistema mucociliar y la actividad de los macrófagos alveolares. Esta situación debilita la capacidad de respuesta del hospedador y facilita la colonización por bacterias oportunistas (1). En una fase posterior, la proliferación bacteriana desencadena respuestas inflamatorias que intensifican el daño en los tejidos pulmonares y contribuyen a la aparición y agravamiento de los signos clínicos (2).
Esta secuencia no es universal, ya que determinadas bacterias, como M. hyopneumoniae, pueden actuar como patógenos primarios y facilitar la entrada de infecciones virales, entre ellas el PRRSV y el PCV2 (Yang et al., 2020). También existen situaciones en las que algunas bacterias favorecen la colonización por otras bacterias o en las que ciertos virus predisponen a la infección por otros virus. Ejemplos de altos niveles de codetección estarían los hallados entre el coronavirus respiratorio porcino y el virus de la gripe A porcina, entre S. suis y G. parasuis, o entre M. hyopneumoniae y P. multocida (Zhu et al., 2021; Renzhammer et al., 2023; Bedsted et al., 2024).
Estas interacciones muestran que la enfermedad no depende de un solo microorganismo ni un solo tipo de secuencia infectiva, sino de una red compleja de patógenos que se influyen entre sí. Además, esta red no es fija, puede cambiar con el tiempo según factores como la edad del animal, las prácticas de manejo, el estado de vacunación y el uso de antibióticos.
PAPEL Y RELEVANCIA DE LOS BIOFILMS
Los biofilms o biopelículas son una comunidad de bacterias que se agrupan y se adhieren a una superficie que puede ser externa o dentro del hospedador, quedando protegidas por una especie de capa pegajosa, llamada matriz extracelular que ellas mismas producen (Pankratov et al., 2022).
Los biofilms representan un mecanismo clave de virulencia en el CRP, especialmente en infecciones crónicas y persistentes.
Dentro de los biofilms, las bacterias adoptan un crecimiento lento y quedan incrustadas en una matriz extracelular que aumenta su resiliencia frente a situaciones estresantes, como el uso de desinfectantes, antibióticos o las defensas inmunitarias del hospedador.
La organización en forma de biofilms facilita la adaptación y cooperación entre distintas especies bacterianas, lo que favorece su persistencia a largo plazo (Rather et al., 2021) (Figura 3).
FORMACIÓN DE BIOFILM EN EL COMPLEJO RESPIRATORIO PORCINO
BACTERIAS PRIMARIAS
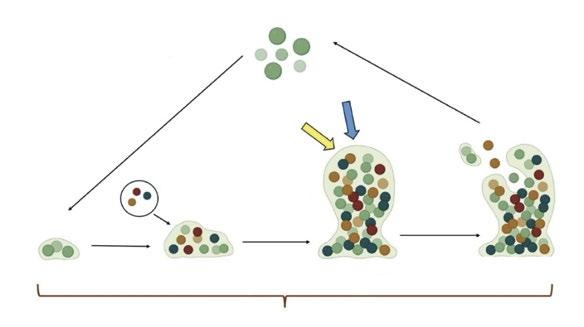
BACTERIAS SECUNDARIAS
MAYOR CAPACIDAD DE EVASIÓN INMUNE
AUMENTO DE LA RESISTENCIA A LOS ANTIBIÓTICOS
TRANSFERENCIA HORIZONTAL DE GENES
FIJACIÓN CRECIMIENTO MADURACIÓN DESPRENDIMIENTO
Favorecido por factores ambientales y genéticos
EN SUPERFICIES EXTERNAS O EL PROPIO PULMÓN PORCINO
POR LOS BIOFILMS, IMPACTA DIRECTAMENTE EN LA SALUD Y EL RENDIMIENTO PRODUCTIVO DE LOS CERDOS
Los animales portadores no solo suponen una principal fuente de infección para otros, tienen una peor conversión alimenticia, llegan más tarde al peso de mercado y aumentan la probabilidad de ser descartados del sistema productivo, traduciéndose en importantes pérdidas económicas.
Estudios recientes demuestran que muchas bacterias del CRP son capaces de formar biofilms ya sea de forma individual o con otras bacterias, entre las que destacan A. pleuropneumoniae, P. multocida, B. bronchiseptica, G. parasuis y S. suis.
Un fenómeno muy curioso es que, en algunos casos, como en M. hyopneumoniae, cuanto más biofilm es capaz de formar la cepa, más virulenta es (Wu et al., 2022).
Las interacciones entre distintas bacterias en un mismo biofilm suelen relacionarse con un aumento del grosor del mismo y mayor persistencia de la infección en comparación con aquellos compuestos por una sola especie, lo que supone una mayor resistencia a los antibióticos (MiguélezPérez et al., 2024).
BACTERIANAS, SISTEMAS REGULATORIOS Y FACTORES DERIVADOS DEL HOSPEDADOR PRESENTES EN EL MOCO RESPIRATORIO
La mayor dificultad sanitaria es que el biofilm no es un “microbio suelto”, sino una estructura donde la matriz funciona como barrera física y química frente a los antimicrobianos y desinfectantes, además de conferir a las bacterias una mayor tolerancia al estrés ambiental.
Además, se ha demostrado que bacterias pertenecientes al CRP pueden formar biofilms no solo dentro del propio cerdo, sino también en superficies externas donde pueden llegar a infectar a los animales (Loera-Muro et al., 2021).
Muchas recomendaciones de usos de desinfectantes no están diseñadas para bacterias estructuradas como biofilms, donde potencialmente la concentración y/o los tiempos de aplicación se deban aumentar para lograr atravesar la matriz (Richter et al., 2023).
De manera universal, para evitar la formación de biofilm es preciso limpiar antes de desinfectar.
Esta limpieza debe ser agresiva para eliminar el biofilm y otros posibles residuos, como la cal o la grasa que impiden la correcta acción de los desinfectantes.
En la granja, los puntos críticos donde el biofilm tiende a persistir son los suelos de rejilla, los bebederos, las tetinas y los comederos (Nakanishi et al., 2021).
Por ello, es fundamental un diseño que permita la mayor accesibilidad posible a todos los puntos y cuyo material sea fácilmente limpiable.
Un punto muy importante a tener en cuenta es la limpieza de las tuberías, especialmente tras tratamientos medicados a través del agua de bebida pues los depósitos pueden permitir la acumulación de biofilms.
LAS
EN LOS BIOFILMS, COMBINADAS CON MEJORAS EN EL MANEJO Y LA PREVENCIÓN, REPRESENTAN UNA VÍA PROMETEDORA PARA MITIGAR LA ENFERMEDAD
CRÓNICA EN EL GANADO PORCINO
El Complejo Respiratorio Porcino se comprende mejor como una enfermedad dinámica y polimicrobiana impulsada por interacciones complejas entre virus, bacterias y el hospedador.
Los patógenos secundarios, los biofilms y las interacciones entre patógenos desempeñan un papel central en la persistencia y la gravedad de la enfermedad.
Por ello, un cambio hacia enfoques integrados es la mejor opción para mejorar la salud y la productividad porcina frente al desafío del CRP.
BIBLIOGRAFÍA
Bedsted, A. E., Goecke, N. B., Hjulsager, C. K., Ryt-Hansen, P., Larsen, K. C., Rasmussen, T. B., Bøtner, A., Larsen, L. E., & Belsham, G. J. (2024). High-throughput screening for respiratory pathogens within pigs in Denmark; analysis of circulating porcine respiratory coronaviruses and their association with other pathogens. Virus Research, 350. https://doi.org/10.1016/j. virusres.2024.199501
Loera-Muro, A., Ramírez-Castillo, F. Y., Moreno-Flores, A. C., Martin, E. M., Avelar-González, F. J., & Guerrero-Barrera, A. L. (2021). Actinobacillus pleuropneumoniae Surviving on Environmental Multi-Species Biofilms in Swine Farms. Frontiers in Veterinary Science, 8. https://doi.org/10.3389/FVETS.2021.722683/FULL
Miguélez-Pérez, R., Mencía-Ares, O., Gutiérrez-Martín, C. B., González-Fernández, A., Petrocchi-Rilo, M., Delgado-García, M., & Martínez-Martínez, S. (2024). Biofilm formation in Streptococcus suis: in vitro impact of serovars and assessment of coinfections with other porcine respiratory disease complex bacterial pathogens. Veterinary Research, 55(1), 157. https://doi.org/10.1186/ S13567-024-01412-9
Nakanishi, E. Y., Palacios, J. H., Godbout, S., & Fournel, S. (2021). Interaction between Biofilm Formation, Surface Material and Cleanability Considering Different Materials Used in Pig Facilities—An Overview. Sustainability 2021, Vol. 13, 13(11). https://doi.org/10.3390/SU13115836
Nuñez-Anita, R. E., Calderón-Rico, F., Pérez-Duran, F., Arenas-Arrocena, M. C., Zamora-Avilés, A. G., Franco-Correa, L. E., Bravo-Patiño, A., & Hernández-Morales, I. (2023). Response of lymphocytes from pigs naturally infected with porcine respiratory disease complex at 3 different stages of development - PubMed. Canadian Journal of Veterinary Research, 87(2), 110–119. https://pubmed.ncbi.nlm.nih.gov/37020577/ Pankratov, T. A., Nikolaev, Y. A., Yushina, Y. K., Tikhonova, E. N., & El-Registan, G. I. (2022). Forms of Bacterial Survival in Model Biofilms. Coatings, 12(12). https://doi. org/10.3390/COATINGS12121913/S1
Rather, M. A., Gupta, K., & Mandal, M. (2021). Microbial biofilm: formation, architecture, antibiotic resistance, and control strategies. Brazilian Journal of Microbiology, 52(4), 1701. https://doi.org/10.1007/S42770-021-00624-X
Renzhammer, R., Auer, A., Loncaric, I., Entenfellner, A., Dimmel, K., Walk, K., Rümenapf, T., Spergser, J., & Ladinig, A. (2023). Retrospective Analysis of the Detection of Pathogens Associated with the Porcine Respiratory Disease Complex in Routine Diagnostic Samples from Austrian Swine Stocks. Veterinary Sciences, 10(10). https://doi.org/10.3390/vetsci10100601
Richter, A. M., Konrat, K., Osland, A. M., Brook, E., Oastler, C., Vestby, L. K., Gosling, R. J., Nesse, L. L., & Arvand, M. (2023). Evaluation of Biofilm Cultivation Models for Efficacy Testing of Disinfectants against Salmonella Typhimurium Biofilms. Microorganisms, 11(3). https://doi.org/10.3390/MICROORGANISMS11030761
Saade, G., Deblanc, C., Bougon, J., Marois-Créhan, C., Fablet, C., Auray, G., Belloc, C., Leblanc-Maridor, M., Gagnon, C. A., Zhu, J., Gottschalk, M., Summerfield, A., Simon, G., Bertho, N., & Meurens, F. (2020). Coinfections and their molecular consequences in the porcine respiratory tract. Veterinary Research, 51(1). https:// doi.org/10.1186/S13567-020-00807-8
Wu, Y., Yu, Y., Hua, L., Wei, Y., Gan, Y., Chenia, H. Y., Wang, Y., Xie, X., Wang, J., Liu, M., Shao, G., Xiong, Q., & Feng, Z. (2022). Genotyping and biofilm formation of Mycoplasma hyopneumoniae and their association with virulence. Veterinary Research, 53(1), 95. https://doi. org/10.1186/S13567-022-01109-X
Yang, S., Oh, T., Mago, J., Iwakuma, A., & Chae, C. (2020). Optimal vaccination strategy against Mycoplasma hyopneumoniae, porcine reproductive and respiratory syndrome virus, and porcine circovirus type 2 in case of early M. hyopneumoniae infection. Veterinary Medicine and Science, 6(4), 860–874. https:// doi.org/10.1002/VMS3.284
Zhu, H., Chang, X., Zhou, Jinzhu, Wang, D., Zhou, Junming, Fan, B., Ni, Y., Yin, J., Lv, L., Zhao, Y., He, K., & Li, B. (2021). Co-infection analysis of bacterial and viral respiratory pathogens from clinically healthy swine in Eastern China. Veterinary Medicine and Science, 7(5), 1815–1819. https://doi.org/10.1002/vms3.533
J. Abadías, C. Farré, J. Hernández y E. Maiques
Servicios Técnicos de Porcino Zoetis
a neumonía enzoótica en cerdos, causada por Mycoplasma hyopneumoniae (Mhp), es un problema importante para la producción porcina. Caracterizada principalmente por una tos no productiva¹, provoca considerables pérdidas económicas en
Descarga el PDF
MLos estudios científicos han demostrado que la infección por Mhp predispone a infecciones secundarias por otros patógenos, como Actinobacillus pleuropneumoniae4 o Pasteurella multocida5
Además de las coinfecciones, factores como el manejo, medio ambiente y el estatus sanitario de los animales pueden afectar a la severidad de la neumonía enzoótica. Por tanto, las estrategias de control son muy importantes para lograr la rentabilidad en la producción porcina6.
La mayoría de los lechones en sistemas de producción intensivos son vacunados frente a Mhp y numerosos estudios han evaluado la eficacia y seguridad de las vacunas en condiciones de campo⁷-¹⁰.
La vacunación de lechones ha demostrado reducir:
Las pérdidas de peso.
La prevalencia de cerdos con lesiones pulmonares neumónicas.
La severidad de las lesiones en los cerdos afectados.
La fabricación de vacunas frente a Mhp requiere el cultivo en un medio suplementado con suero porcino y su posterior inactivación.
Actualmente, se sabe que la protección inmunitaria está conferida solo por una parte del cultivo celular de Mhp, ya que al separar las células enteras y el sobrenadante de dicho cultivo, mediante centrifugación y sedimentación, y aplicarlos como vacuna, se obtiene protección únicamente con la fracción sobrenadante (Tabla 1).
Por tanto, se deduce que los componentes antigénicos protectores del sobrenadante no requieren la presencia de células enteras de Mhp como parte de la vacuna¹¹.
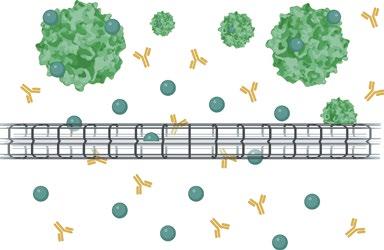
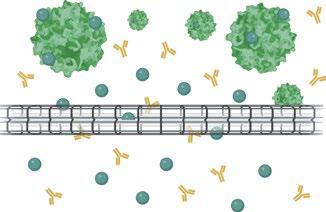
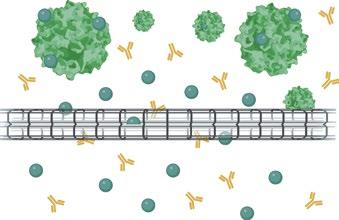
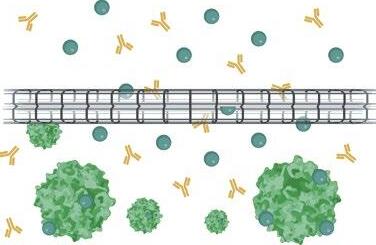
Zoetis ha desarrollado CircoMax Myco® aplicando un proceso de purificación de la fracción de Mhp en la que solo permanecen los antígenos inmunógenos, mediante la filtración de las células enteras innecesarias para la inmunización del animal (Figura 1).
De esta forma, se reduce la biomasa total de la vacuna, lo que:
Incrementa su seguridad.
Reduce las reacciones adversas en los lechones vacunados.
Aumenta la concentración inmunógena efectiva.
FIGURA 1
Proceso de purificación de las células de Mhp en el que, gracias a la filtración, se conservan los antígenos esenciales para la protección frente a Mycoplasma al tiempo que se eliminan los componentes innecesarios.
Grupo Vacuna
de cerdos
de cerdos con lesiones pulmonares Porcentaje de lesiones pulmonares Mhp recuperado (log CCU/0,2ml)
aSemanas tras 1ª vacunación. bDesafío. cAnticuerpos < 1:4 se convierten a 2.0. *Diferencia significativa grupo C (P<0,05) 1 0 2 3 4 5
TABLA 1
Porcentaje de lesión pulmonar tras la vacunación y desafío con Mhp.
El estudio presentado en el congreso ESPHM 2024 sobre la valoración de lesiones pulmonares en el Grupo Jorge¹² mostró un incremento en 2023 respecto a 2021 y 2022.
La valoración de las lesiones en este estudio se realizó mediante el método Mesones, en el que los pulmones se puntúan de 0 a 5, donde 0 indica ausencia de lesión y 5 el mayor grado de lesión (Figura 2).
FIGURA 2
Valoración de lesión pulmonar mediante sistema Mesones.
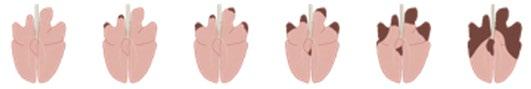
Posteriormente se calcula la puntuación total de la valoración mediante sumatorio de los pesos ponderados del número de pulmones según su grado de lesión:
Puntuación = (nº grado 0 x 0) + (nº grado 1 x 1) + (nº grado 2 x 2) + (nº grado 3 x 3) + (nº grado 4 x 4) + (nº grado 5 x 5)
El índice de lesión se obtiene dividiendo la puntuación entre el total de pulmones con lesión (no se incluyen los pulmones puntuados con grado 0), lo que indica la gravedad del proceso en los animales enfermos.
Índice de lesión
∑ (nº de pulmones x grado de lesión) nº total de pulmones con algún grado de lesión (1-5)
Por último, el índice de enfermedad se obtiene dividiendo la puntuación entre el total de los pulmones valorados, donde se incluyen los puntuados con grado cero.
Índice de enfermedad
∑ (nº de pulmones x grado de lesión) nº total de pulmones valorados (0-5)
El índice de enfermedad indica la situación sanitaria, donde:
Un resultado < 0,8 se entiende como un lote con micoplasmosis controlada.
Un valor > 1,0 es una situación de revisión urgente de la neumonía.
El estudio continúa en el Grupo Jorge, con la valoración de más de un millón de pulmones al año hasta 2025, lo que ha permitido determinar que el índice medio de enfermedad de todos los lotes evaluados muestra un aumento anual de la neumonía enzoótica (Gráfica 1).
Índice de neumonía enzoótica (diagramas de caja)
1
Índice de enfermedad medio anual de neumonía enzoótica.
Porcentaje de lotes con índice de enfermedad de neumonía enzoótica superior a 1,0 por semana.
Este aumento de lesiones va acompañado de una estacionalidad de la enfermedad que no se observaba en los años previos (2021 y 2022), lo que podría sugerir una falta de protección vacunal, con animales que cursan la enfermedad como si no estuvieran vacunados.
% de lotes con índice de neumonía > 1,0
La aparición de cepas de alta virulencia del virus del síndrome reproductivo y respiratorio porcino (PRRSV) tiene un efecto inmunosupresor en los lechones, especialmente en las primeras edades, y a menudo exacerba infecciones secundarias como la causada por Mhp en cerdos.
La interferencia del virus PRRSV con la eficacia de otras vacunas (como la bacterina de Mhp) puede deberse a la sobreexpresión de citocinas inmunosupresoras como la IL-10.
Está demostrado que la vacuna frente a Mhp por sí sola no logra los resultados esperados si existe coinfección por PRRSV en condiciones de campo. Por tanto, se debe considerar el control de PRRSV para obtener mejores resultados con la vacunación frente a Mhp¹³.
La administración de la vacuna MLV frente a PRRS antes de la inmunización frente a Mhp también debe realizarse con vacunas en las que la inducción de IL-10 sea poco frecuente, como se ha demostrado con Suvaxyn® PRRS MLV¹⁴,¹⁵.
La revisión contemporánea de estrategias de control de Mhp por Zoetis afirma: “Controla las nulíparas y controlarás el micoplasma” poniendo de manifiesto la importancia de una la reposición en las granjas de cerdas, especialmente cuando se trata de cerditas negativas con destino a granjas positivas.
Las nulíparas naïve deben exponerse a Mhp en cuarentena al menos 200 días previos al parto para que haya finalizado la excreción y evitar la transmisión de cerda a lechón en maternidad16
En caso contrario podremos tener primerizas negativas destetando lechones sin protección maternal o primerizas excretando Mhp con un porcentaje elevado de lechones colonizados al destete.
EL NÚMERO DE LECHONES
En ambos casos se producirán muy inestables: primero, por la llegada de lechones naïve a un entorno infectado, y en el segundo, por la llegada de lechones que excretan Mhp, o la combinación de ambas situaciones, que es la más habitual.
AL DESTETE DETERMINA LA CANTIDAD DE ANIMALES ENFERMOS POR Mhp
CONVENIENCIA
La conveniencia de la vacunación de lechones viene dada por reducción del manipulado en las granjas en favor del uso de vacunas combinadas con varios antígenos, siendo muy habitual la de circovirus (PCV2) y Mhp.
Recientemente, se ha publicado un estudio comparativo de algunas vacunas combinadas y una vacuna monovalente¹⁸ Myco® es la que obtiene el menor valor de lesión entre las combinadas.
GRÁFICA 3
Eficacia vacunal mediante valoración de lesiones pulmonares después de desafío con Mhp (Palmai et al., 2025).
Las vacunas combinadas de PCV2 y Mhp suelen aplicarse a partir de la tercera semana de vida para evitar la interferencia de los anticuerpos maternales en el momento de la vacunación. En la mayoría de los casos, es la opción más escogida por los veterinarios en el plan sanitario.
Los lechones se infectan normalmente a partir de sus madres³ y estudios de prevalencia en campo indican que el 1,5 - 4 % de los lechones de entre 1 y 3 semanas de vida son PCR positivos a Mhp, mediante hisopos nasales o necropsias¹⁹.
La conveniencia de la vacunación puede verse comprometida por una falta de eficacia asociada a las causas explicadas anteriormente.
En esos casos, la vacunación frente a Mhp puede adelantarse a la primera semana de vida para conseguir lechones inmunizados al destete, lo que ha demostrado una reducción de lechones colonizados²⁰.
MWLLS*: Puntuación media ponderada de lesión pulmonar.
A, B: Letras diferentes indican diferencias estadísticamente signi cativas entre grupos (p < 0,05); grupos que comparten la misma letra no presentan diferencias signi cativas entre sí.
Se ha demostrado que la vacunación de lechones con una vacuna inactivada de Mhp (Suvaxyn® MH-One; Zoetis®) con menos de 1 semana de edad (4 a 5 días) bajo condiciones de campo reduce significativamente las lesiones pulmonares y la pérdida de peso21.
La eficacia de las vacunas monodosis frente a Mhp también se ha demostrado cuando se administran a lechones de una semana de edad en presencia de anticuerpos maternales, tanto con títulos de liberación comerciales²²,²³ como con el título mínimo de liberación del lote²⁴, con desafío a las dos semanas postvacunación.
El control de la neumonía enzoótica debe intensificarse en condiciones de producción que desafían la inmunización frente a Mhp de los lechones, como:
La inestabilidad causada por infecciones víricas, como el virus PRRS, que no permiten una correcta inmunización vacunal de los lechones frente a Mhp.
La inestabilidad derivada de subpoblaciones negativas/ positivas, protegidas/no protegidas y excretoras de Mhp.
• Protección frente a PCV2 a, b, d y Mycoplasma hyopneumoniae
• Única vacuna con dos genotipos de PCV 2 *
LARGA DURACIÓN DE INMUNIDAD
RTU ** - EN UNA SOLA DOSIS
Descarga el PDF
Elizabeth M. Due1, Kayla A. Miller1, Eric R. Burrough2 , Emma T. Helm3 y Nicholas K. Gabler1
1Departamento de Ciencia Animal, Universidad Estatal de Iowa, Estados Unidos
2Departamento de Medicina Veterinaria Diagnóstica y de Animales de Producción, Universidad Estatal de Iowa, Estados Unidos
3Facultad de Ciencias Animales, Instituto Politécnico y Universidad Estatal de Virginia, Estados Unidos
EEl inicio de la infección por Escherichia coli enterotoxigénica (ETEC) sigue siendo una fase clave para entender el desarrollo de la diarrea postdestete. Aunque los mecanismos de patogénesis están bien descritos, todavía existen lagunas en la comprensión de las primeras respuestas intestinales tras la infección, especialmente a nivel epitelial. En este contexto, el presente estudio analiza cómo ETEC F18 se adhiere al intestino y cómo esta interacción temprana afecta a la función intestinal y a la dinámica celular, aportando nuevas claves para entender el inicio del proceso diarreico.
E. coli enterotoxigénica es una de las principales causas de diarrea postdestete (DPD) y enfermedad de los edemas (ED) en lechones, generando importantes pérdidas económicas debido a la mortalidad, morbilidad, reducción del crecimiento y aumento de los costes de medicación.
FACTORES DE VIRULENCIA: CÓMO ACTÚA ETEC
El tipo de fimbria y el perfil de enterotoxinas son los dos factores clave de virulencia en la enfermedad por ETEC.
Fimbrias
Entre los lechones afectados por DPD, los tipos de fimbrias adhesivas más frecuentes son: F4 (K88). F18.
Enterotoxinas
Las principales enterotoxinas de ETEC F18 incluyen:
La toxina termolábil (LTI y LTII).
Las toxinas termoestables (STa y STb).
La toxina termoestable enteroagregativa 1 (EAST1).
Las toxinas Shiga (Stx1, Stx2 y sus subtipos). La toxina Stx2e está asociado a la ED.
DE LA INFECCIÓN A LA DIARREA: QUÉ OCURRE EN EL INTESTINO
Los signos clínicos de la DPD y la ED inducidas por ETEC F18 suelen manifestarse entre las 2 y 3 semanas tras el destete y pueden prolongarse hasta 10 días.
Diversos estudios han empleado distintas dosis de inoculación de ETEC F18 para reproducir esta enfermedad en lechones.
Luise et al. (2019) señalaron que, aunque los animales pueden desarrollar diarrea, existe una elevada variabilidad en la gravedad e incidencia, lo que probablemente se deba a diferencias entre estudios en la susceptibilidad genética asociada:
El gen α(1,2)-fucosiltransferasa (FUT1).
La competencia inmunitaria.
La edad.
La exposición natural a E. coli procedente de la cerda, del entorno o de ambos.
Tras la ingestión oral de ETEC F18, las fimbrias se adhieren a receptores específicos en la membrana apical de los enterocitos.
Las enterotoxinas inducen la acumulación de monofosfato de adenosina cíclico (AMPc) y monofosfato de guanosina cíclico (GMPc), lo que provoca alteraciones en la función del regulador de la conductancia transmembrana de la fibrosis quística (CFTR) en los enterocitos, generando desequilibrios en los electrolitos y en el flujo de agua en el intestino delgado.
EPITELIAL DE ETEC F18
DETERMINA LA GRAVEDAD DE LA ENFERMEDAD
Otro de los efectos comúnmente descritos de la enfermedad por ETEC en porcino es la alteración de la morfología intestinal:
Disminución de la altura de las vellosidades.
Aumento de la profundidad de las criptas.
Cambios en la integridad de la barrera intestinal, ya sea por un incremento de la permeabilidad transcelular y paracelular o por la disrupción de las proteínas de las uniones estrechas.
Estudios previos han descrito aumentos de IL-6, IL-8 y TNF-α en el intestino delgado de lechones, lo que sugiere una respuesta inflamatoria que puede agravar el daño epitelial y contribuir a la disfunción intestinal.
La proliferación, maduración y diferenciación de las células epiteliales intestinales, reguladas por las vías de señalización Notch y Wnt, son esenciales para mantener y restaurar la función y la integridad del intestino.
A este respecto, se ha demostrado que las enterotoxinas aumentan la proliferación de células madre en las criptas, pero inhiben la diferenciación de las células madre intestinales, lo que significa que la infección por ETEC F18 afecta a los procesos de renovación y reparación del epitelio intestinal.
A pesar de que los mecanismos de patogénesis de ETEC están bien establecidos, las respuestas epiteliales y funcionales tempranas tras la adhesión de ETEC F18 siguen estando poco caracterizadas.
Este estudio tuvo como objetivo evaluar el efecto de distintas dosis de desafío oral con ETEC F18 sobre su adhesión al epitelio intestinal y sobre diversos indicadores de función intestinal en lechones durante un periodo de 5 días. Además, se analizó el impacto de la infección temprana sobre marcadores de proliferación, diferenciación y renovación de las células epiteliales.
Se planteó la hipótesis de que un aumento en la dosis de desafío favorecería una mayor adhesión de ETEC F18 al epitelio intestinal, comprometiendo la función, la integridad y la renovación epitelial, y dando lugar a una mayor incidencia de diarrea y a una reducción del rendimiento productivo en lechones.
ANIMALES Y DISEÑO EXPERIMENTAL
ANIMALES Y DISEÑO EXPERIMENTAL
Durante el estudio se distribuyeron 24 lechones recién destetados en cuatro grupos experimentales: un grupo control no inoculado y tres grupos desafiados con distintas dosis de ETEC F18 (10⁷, 10⁸ y 10⁹ UFC/ml).
Se controlaron parámetros productivos (consumo de pienso y el crecimiento) y la consistencia fecal mediante un sistema de puntuación diaria.
Se tuvo en cuenta la susceptibilidad genética de los animales (gen FUT1) y se mantuvieron condiciones controladas de alojamiento y alimentación sin uso de antimicrobianos.
TOMA DE MUESTRAS Y ANÁLISIS
TOMA DE MUESTRAS Y ANÁLISIS
Se obtuvieron muestras fecales en distintos momentos del ensayo (antes y después de la inoculación) para evaluar la evolución de la infección.
Al final del estudio (5 días postinoculación), los animales fueron sacrificados y se obtuvieron muestras de contenido intestinal y tejidos, especialmente del íleon, para analizar la presencia de ETEC (genes F18 y LT) mediante PCR.
Además, se tomaron muestras de yeyuno, íleon y colon para estudios histológicos, y se midió el pH del contenido digestivo en diferentes segmentos del tracto gastrointestinal. Parte del tejido ileal también se conservó para análisis posteriores relacionados con la función intestinal.
DE LA INTEGRIDAD Y FUNCIÓN DE LA BARRERA INTESTINAL EVALUACIÓN DE LA INTEGRIDAD Y FUNCIÓN DE LA BARRERA INTESTINAL
EVALUACIÓN
Se evaluó la integridad de la barrera intestinal y la función del íleon mediante el uso de cámaras de Ussing con tejido fresco obtenido tras el sacrificio. Este sistema permitió medir:
La resistencia transepitelial (TER).
La permeabilidad intestinal.
El transporte activo de nutrientes como glucosa y glutamina.
ESTOS ANÁLISIS EX VIVO SE UTILIZARON PARA DETERMINAR POSIBLES ALTERACIONES EN LA FUNCIÓN Y LA INTEGRIDAD DEL EPITELIO INTESTINAL TRAS EL DESAFÍO CON ETEC F18
ANÁLISISESTRUCTURAL Y CELULAR DEL INTESTINO
ANÁLISIS ESTRUCTURAL Y CELULAR DEL INTESTINO
Se evaluó la morfología intestinal en yeyuno, íleon y colon mediante análisis histológico, midiendo la altura de las vellosidades y la profundidad de las criptas para calcular su relación.
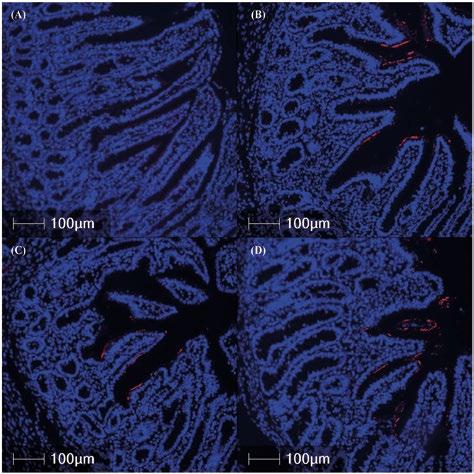
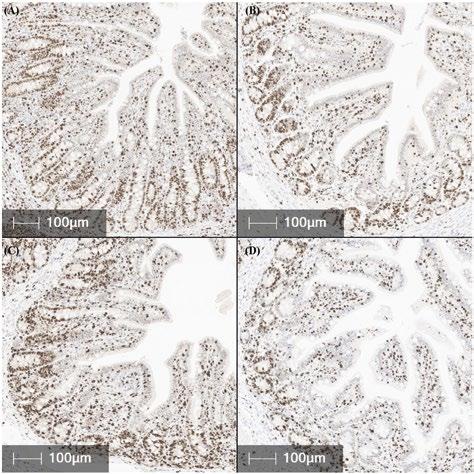
Además, se utilizaron técnicas de inmunohistoquímica e inmunofluorescencia para analizar la proliferación celular (Ki67) y la secreción de cloro asociada a CFTR en los distintos segmentos intestinales.
Por otro lado, se aplicó hibridación in situ (ISH) para detectar y cuantificar la adhesión de ETEC F18 al epitelio intestinal, permitiendo localizar la presencia bacteriana directamente en los tejidos.
ABUNDANCIA GÉNICA
ABUNDANCIA GÉNICA
Se analizaron muestras fecales y de contenido ileal para cuantificar la presencia de ETEC mediante PCR, determinando la abundancia de los genes F18 y LT Además, se evaluó la expresión génica en tejido ileal mediante RT-qPCR, tras la extracción de ARN y su conversión a ADNc.
Los niveles de expresión se normalizaron utilizando un gen de referencia, lo que permitió analizar cambios en genes relacionados con la función intestinal y la respuesta epitelial.
En comparación con el grupo control (NC), todos los lechones desafiados con ETEC presentaron puntuaciones fecales significativamente más altas, indicativas de diarrea, siendo el grupo 10⁸ el que mostró una mayor incidencia media diaria (Gráfica 1).
Para confirmar el desafío con ETEC F18, se analizó la abundancia de los genes F18 y LT en contenido ileal y fecal a los 5 días postinoculación mediante PCR (Gráfica 2).
La abundancia de F18 en el íleon fue mayor en todos los grupos desafiados respecto al control, destacando los grupos 10⁷ y 10⁹.
La abundancia de la toxina LT en el íleon también fue superior en los grupos desafiados.
En las heces, tanto F18 como LT mostraron niveles más elevados en los grupos infectados, sin diferencias claras entre las distintas dosis.
GRÁFICA 1
Puntuación fecal diaria de lechones desafiados con 0 (control negativo, NC), 10⁷, 10⁸ o 10⁹ UFC de E. coli enterotoxigénica F18 (ETEC). N = 6 lechones por tratamiento. El valor de p “Desafío” representa la comparación entre el grupo control (NC) y los grupos desafiados con ETEC (10⁷, 10⁸, 10⁹ UFC). Escala de puntuación fecal: 0 = sólido, 1 = semisólido, 2 = blando, 3 = líquido.
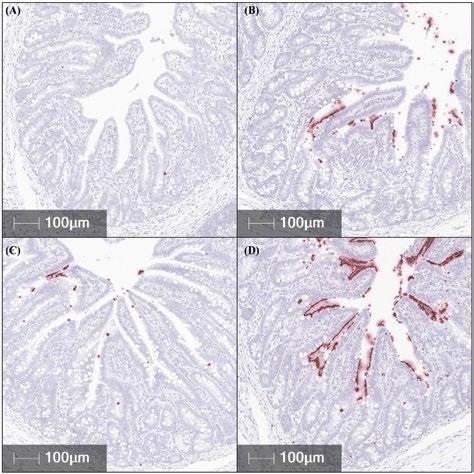
Para que la enfermedad se manifieste plenamente, es necesario que ETEC F18 se adhiera al epitelio intestinal. Mediante ISH se cuantificó esta adhesión en yeyuno, íleon y colon a los 5 días postinoculación.
Los lechones desafiados mostraron una mayor presencia de F18 en el epitelio intestinal, especialmente en el íleon, donde la localización fue significativamente superior a la del grupo control (Figura 1).
EN CONJUNTO, EL DESAFÍO CON ETEC DIO LUGAR A UN AUMENTO MUY MARCADO DE LA ADHESIÓN BACTERIANA EN EL ÍLEON
P tratamiento = 0,022
P desafío = 0,013
Tratamiento × P dpi = 0,219
Desafío × P dpi = 0,297
GRÁFICA 2
Abundancia de los genes F18 y LT en (A) contenido ileal y (B) contenido fecal de lechones a los 5 días postinoculación, tras el desafío con Escherichia coli enterotoxigénica F18 (ETEC) con 0 (control negativo, NC), 10⁷, 10⁸ o 10⁹ UFC. N = 6 lechones por tratamiento. El valor de p “Desafío” representa la comparación entre el grupo control (NC) y los grupos desafiados con ETEC (10⁷, 10⁸, 10⁹ UFC). Los resultados se expresan como Ct inverso (reverse Ct), es decir, la diferencia entre el valor Ct del gen de interés y el Ct máximo del ensayo (40 ciclos de amplificación). Letras diferentes (a, b) indican diferencias significativas (p < 0,05).
RENDIMIENTO PRODUCTIVO
RENDIMIENTO PRODUCTIVO
El peso corporal de los lechones no mostró diferencias entre tratamientos antes del desafío. Tampoco se observaron cambios en la ganancia media diaria (GMD), el consumo de pienso ni en la eficiencia alimentaria durante el periodo experimental.
Sin embargo, tras el desafío, la GMD tendió a ser menor en el grupo desafiado con 10⁸ UFC en comparación con el resto de grupos, aunque sin alcanzar diferencias significativas.
A los 5 días postinoculación se observaron algunos cambios en el pH gastrointestinal.
El pH gástrico fue mayor en los grupos 10⁷ y 10⁹.
El pH ileal tendió a incrementarse en los animales desafiados, especialmente en el grupo 10⁹.
No se detectaron diferencias en el pH del yeyuno ni del colon.
A nivel morfología intestinal, se observó una reducción de la altura de las vellosidades en el yeyuno en los grupos 10⁸ y 10⁹, junto con una disminución de la relación vellosidad:cripta en los animales desafiados, lo que sugiere una alteración de la maduración epitelial. Sin embargo, no se detectaron cambios en la morfología del íleon ni en la profundidad de las criptas.
FIGURA 1
Imágenes representativas de hibridación in situ de la abundancia de transcritos de F18 (tinción roja) en tejido ileal fijado de lechones desafiados con E. coli enterotoxigénica F18 a los 5 días postinoculación. (A–D) representan: control negativo (0 UFC, A—arriba izquierda), 10⁷ UFC (B—arriba derecha), 10⁸ UFC (C—abajo izquierda) y 10⁹ UFC (D—abajo derecha). N = 6 lechones por tratamiento.
En cuanto a la función secretora, la abundancia de la proteína CFTR aumentó en yeyuno, íleon y colon en los lechones desafiados (Figura 2), especialmente en los grupos de mayor dosis, lo que es consistente con el aumento de la diarrea observado.
Por otro lado, el marcador de proliferación celular Ki67 no mostró cambios en el yeyuno, pero tendió a disminuir en el íleon en el grupo 10⁹, lo que sugiere una posible reducción en la renovación epitelial (Figura 3).
A pesar de estos cambios, la integridad de la barrera intestinal y el transporte de nutrientes (glucosa y glutamina) no se vieron afectados, lo que indica que, en esta fase temprana de la infección, la función intestinal se mantiene preservada.
FIGURA 2
Imágenes representativas de la abundancia de la proteína reguladora de la conductancia transmembrana de la fibrosis quística (CFTR) en el íleon (fluorescencia roja) en tejidos fijados de lechones desafiados con E. coli enterotoxigénica F18 a los 5 días postinoculación. (A–D) representan: control negativo (0 UFC, A—arriba izquierda), 10⁷ UFC (B—arriba derecha), 10⁸ UFC (C—abajo izquierda) y 10⁹ UFC (D—abajo derecha). N = 6 lechones por tratamiento.
FIGURA 3
Imágenes representativas de la expresión positiva de Ki67 (tinción marrón), un marcador de proliferación celular, en tejido ileal fijado de lechones desafiados con E. coli enterotoxigénica F18 a los 5 días postinoculación. (A–D) representan: control negativo (0 UFC, A—arriba izquierda), 10⁷ UFC (B—arriba derecha), 10⁸ UFC (C—abajo izquierda) y 10⁹ UFC (D—abajo derecha). N = 6 lechones por tratamiento.
EXPRESIÓN GÉNICA EN ÍLEON
EXPRESIÓN GÉNICA EN ÍLEON
La infección por ETEC F18 provocó algunos cambios en la expresión de genes relacionados con el transporte y la función intestinal.
Se observó un aumento en la expresión de SGLT1 en los animales desafiados, mientras que CFTR tendió a incrementarse en las dosis más altas. Por el contrario, otros marcadores de transporte de agua e iones apenas se vieron afectados.
En relación con la renovación epitelial, no se detectaron cambios en los principales marcadores de proliferación celular. Sin embargo, se observaron alteraciones en la vía de señalización Notch, con una tendencia a mayor expresión de Notch y menor de Hes1, lo que sugiere posibles cambios en los procesos de diferenciación celular.
En conjunto, estos resultados indican que, aunque la infección modula algunos mecanismos funcionales y de regulación celular, los cambios a nivel génico son limitados en esta fase temprana del proceso.
DISCUSIÓN
Los estudios de desafío con ETEC F18 han empleado un amplio rango de dosis de inoculación, generalmente entre 10⁸ y 10¹¹ UFC, lo que suele dar lugar a una menor consistencia fecal y a la aparición de diarrea. Sin embargo, existe una gran variabilidad entre estudios en cuanto a la incidencia, gravedad y duración de la diarrea.
A pesar de ello, la relación entre la carga de ETEC F18, su adhesión al epitelio y sus efectos posteriores sobre la función intestinal, la integridad y la dinámica epitelial —incluyendo proliferación, diferenciación y renovación— sigue estando poco caracterizada.
La diarrea podría desempeñar un papel en la defensa del huésped, ya que, aunque la expresión del gen claudina-2 en el íleon tendió a disminuir en los lechones desafiados, se ha descrito que el flujo de agua mediado por esta proteína puede favorecer la eliminación de patógenos.
CFTR Y MECANISMOS DE SECRECIÓN
CFTR Y MECANISMOS DE SECRECIÓN
En estudios con ETEC K88 se ha descrito un aumento simultáneo de la expresión de ARNm y proteína de CFTR.
MODELO EXPERIMENTAL Y APARICIÓN DE LA DIARREA
MODELO EXPERIMENTAL Y APARICIÓN DE LA DIARREA
La mayoría de los estudios con ETEC F18 tienen una duración de entre 13 y 21 días, en línea con el hecho de que la diarrea postdestete suele aparecer entre 2 y 3 semanas tras el destete, alcanzando su pico entre los días 2 y 6 postinoculación. En este trabajo, se realizó un desafío de 5 días en lechones a los 10 días postdestete, utilizando distintas dosis de inoculación, observándose diarrea entre los días 3 y 5 postinoculación, especialmente en los animales que recibieron la dosis de 10⁸ UFC, en concordancia con estudios previos.
En el presente estudio, la expresión de ARNm de CFTR en el íleon tendió a ser mayor en los lechones desafiados con 10⁹ UFC y menor en los que recibieron 10⁸ UFC. Sin embargo, la abundancia de proteína CFTR en el epitelio aumentó en todos los animales desafiados, especialmente en el íleon.
Este incremento, pese a la variabilidad en la expresión génica, podría explicarse por mecanismos de regulación postraduccional inducidos por las enterotoxinas asociadas a F18 (LT, STa y STb) y su localización.
Se sabe que las enterotoxinas de ETEC F18 inducen diarrea secretora mediante la secreción de cloro y agua dependiente de AMPc a través de CFTR. Una vez dentro de los enterocitos, estas toxinas activan los canales CFTR mediante la fosforilación de proteínas reguladoras, lo que incrementa la secreción de cloro y bicarbonato hacia la luz intestinal y provoca un flujo osmótico de agua que contribuye a la diarrea.
Estos resultados sugieren que la funcionalidad de CFTR en presencia de ETEC F18 no siempre está directamente relacionada con su expresión a nivel génico.
En línea con el aumento de la localización de CFTR en el epitelio y de la secreción de iones, el pH luminal del íleon tendió a ser más alcalino en los lechones desafiados en comparación con el grupo control.
MEJORANDO LA DETECCIÓN DE ETEC EN TEJIDO
MEJORANDO LA DETECCIÓN DE ETEC EN TEJIDO
La confirmación de la diarrea postdestete inducida por ETEC F18 requiere el aislamiento de E. coli hemolítica y la detección de fimbrias F18 y genes de enterotoxinas. En este estudio, el uso combinado de qPCR para cuantificar los genes F18 y LT en heces e íleon, junto con la ISH para localizar estos genes en el tejido intestinal, permitió mejorar la precisión diagnóstica.
Tal como se planteaba en la hipótesis, la abundancia del gen F18 en heces fue mayor en los lechones desafiados, confirmando la colonización. Aunque métodos habituales como el cultivo fecal o la PCR de genes como FedA permiten validar el modelo de infección, no aportan información sobre la localización bacteriana.
En este sentido, la ISH permitió demostrar que la adhesión de ETEC F18 al epitelio intestinal aumentó en los animales desafiados, especialmente en el íleon, que se confirmó como el principal sitio de colonización.
EL VALOR DE COMBINAR TÉCNICAS MOLECULARES Y DE LOCALIZACIÓN TISULAR PARA MEJORAR LA COMPRENSIÓN Y EL DIAGNÓSTICO DE LA DIARREA
POSTDESTETE
IMPACTO SOBRE LA ESTRUCTURA INTESTINAL
IMPACTO SOBRE LA ESTRUCTURA INTESTINAL
Aunque ETEC F18 provoca principalmente diarrea secretora mediante la liberación de enterotoxinas, también puede alterar de forma significativa los procesos de renovación del epitelio intestinal, comprometiendo la función, la integridad y la capacidad de recuperación de la barrera intestinal.
La infección suele dar lugar a atrofia de las vellosidades e hiperplasia de las criptas, ya que las vellosidades dañadas se desprenden y las células de las criptas aumentan su proliferación como mecanismo compensatorio.
A nivel morfológico, esto se traduce en una disminución de la altura de las vellosidades y un aumento de la profundidad de las criptas, reduciendo la relación vellosidad:cripta y reflejando una mucosa más inmadura y con menor capacidad de absorción.
En este estudio, se observó atrofia en el yeyuno y una disminución de la relación vellosidad:cripta tras 5 días de desafío con ETEC F18. Sin embargo, a pesar de que el íleon fue el principal sitio de adhesión bacteriana, no se detectaron cambios en estos parámetros en comparación con el grupo control.
ALTERACIONES EN LA RENOVACIÓN EPITELIAL
Tras el daño del epitelio intestinal, la proliferación de las células de las criptas puede activarse como respuesta regenerativa para restaurar la integridad y la función del intestino. Esta actividad proliferativa se evalúa habitualmente mediante la tinción de Ki67, un marcador nuclear que identifica células en división activa.
En este estudio, la expresión de Ki67 en el íleon fue menor en los lechones desafiados con 10⁹ UFC de ETEC F18, lo que sugiere una posible inhibición de la renovación epitelial.
La atrofia de las vellosidades y la reducción de la proliferación en respuesta a la infección por ETEC ya han sido descritas previamente y se asocian a daño epitelial mediado por enterotoxinas, al estrés del destete y a la acción de citoquinas inflamatorias.
La vía de señalización Notch, implicada en la diferenciación celular, mostró signos de alteración.
La expresión de Notch aumentó en el íleon de los lechones desafiados, especialmente en los grupos 10⁷ y 10⁸, mientras que en el grupo 10⁹ el incremento fue más moderado.
La expresión de Hes1, un efector clave de esta vía, se redujo, especialmente en el grupo 10⁹.
Este patrón sugiere que a dosis intermedias podrían activarse mecanismos compensatorios para mantener la homeostasis epitelial, mientras que a dosis más altas se superaría la capacidad adaptativa del tejido, alterando la señalización y la renovación epitelial.
En conjunto, estos resultados refuerzan la idea de que los patógenos entéricos pueden interferir en la señalización epitelial y en los mecanismos de renovación celular a través de procesos inflamatorios, estrés oxidativo y alteraciones en la barrera intestinal.
TRANSPORTE DE NUTRIENTES Y FUNCIONALIDAD INTESTINAL
TRANSPORTE DE NUTRIENTES Y FUNCIONALIDAD INTESTINAL
Los enterocitos inmaduros procedentes de las criptas intestinales presentan una menor expresión de enzimas digestivas y transportadores de nutrientes, lo que limita la capacidad de digestión y absorción.
Esta inmadurez, especialmente tras daño epitelial o un recambio acelerado, puede favorecer la malabsorción y la aparición de diarrea osmótica. Además, la expresión y actividad de los transportadores de nutrientes pueden verse alteradas por la infección y el estrés fisiológico.
En este estudio, los lechones desafiados con ETEC F18 mostraron un aumento en la expresión del transportador SGLT1 en el íleon. Sin embargo, este incremento no se tradujo en cambios en el transporte funcional de glucosa o glutamina, lo que sugiere una desconexión entre la expresión génica y la funcionalidad o una maduración incompleta de los enterocitos.
POR ETEC F18 ESTARÍA MÁS RELACIONADA CON
MECANISMOS SECRETORES MEDIADOS POR ENTEROTOXINAS QUE CON UN DAÑO ESTRUCTURAL
DIRECTO DE LA BARRERA INTESTINAL
En línea con la hipótesis planteada, este estudio demuestra que un desafío de 5 días con ETEC F18 incrementa la diarrea y la adhesión bacteriana, especialmente en el íleon.
Este aumento de la diarrea se asocia con una mayor abundancia de CFTR en el epitelio intestinal.
Si bien, la integridad de la barrera intestinal y el rendimiento productivo no se vieron comprometidos en esta fase temprana de la infección, a nivel celular, se observaron cambios en marcadores de proliferación y en la vía de señalización Notch, lo que sugiere una alteración inicial de la homeostasis epitelial.
En conjunto, los resultados apoyan un modelo en el que la diarrea inducida por ETEC F18 se debe principalmente a mecanismos secretores mediados por enterotoxinas y CFTR, más que a un daño estructural del epitelio intestinal. Además, estudios de mayor duración podrían ser necesarios para evaluar completamente el impacto de esta infección sobre la regeneración epitelial, la integridad intestinal y el crecimiento de los lechones.
Artículo traducido y adaptado de: Due EM, Miller KA, Burrough ER, Helm ET and Gabler NK (2025) Evaluation of F18 enterotoxigenic Escherichia coli intestinal attachment and early disease onset in nursery pigs. Front. Vet. Sci. 12:1686769. doi: 10.3389/fvets.2025.1686769 (CC BY)
Protege a los cerdos de forma sostenible con Coliprotec®, la única vacuna viva oral contra el E.coli posdestete disponible en el mercado que ha demostrado reducir la mortalidad y el uso de antibióticos en los nuevos estándares productivos sin óxido de zinc
Para acompañarte en este importante reto y que transiciones de manera efectiva, Elanco dispone de servicios de diagnóstico y de apoyo a la vacunación para que estés seguro de que tus lechones son destetados con la protección que necesitan.
1.Vangroenweghe F. Improved piglet performance and reduced mortality and antimicrobial use following oral vaccination with a live non-pathogenic Escherichia coli against post-weaning diarrhoea. 2021. Austin Journal of Infectious Disease, 8(2): 1048-1051.

Para más información sobre Coliprotec® F4/F18 liofilizado para suspensión oral para porcino, ver ficha técnica
EN CASO DE DUDA, CONSULTA CON TU VETERINARIO
Descarga el PDF
RRodrigo C. Paiva1, Marcelo N. Almeida1 y Lucina Galina Pantoja2
1Universidad Estatal de Iowa
2PIC
scherichia coli (E. coli) es una bacteria gram negativa que puede provocar diversas enfermedades en cerdos, incluyendo diarrea neonatal, septicemia y mastitis. En los últimos años, el Laboratorio de Diagnóstico Veterinario de la Universidad Estatal de Iowa ha reportado un incremento en los casos de diarrea postdestete causados por E. coli, particularmente desde 2019.
Entre 2010 y 2018, los tipos de fimbrias F18 y K88 presentaron un equilibrio en los aislamientos de E. coli.
Sin embargo, con el aumento de los diagnósticos de colibacilosis postdestete, el tipo F18 se convirtió en el predominante, representando el 77,9 % de los casos.
Varios factores podrían estar detrás de este fenómeno, entre ellos:
Cambios en las prácticas antimicrobianas.
Mayor resistencia a los antibióticos.
Ineficacia de las intervenciones inmunológicas.
Una de las hipótesis más interesantes es la susceptibilidad genética de ciertas razas de F18.
La expresión de los receptores específicos en los enterocitos, que permiten la adhesión de esta bacteria, está regulada por el gen
LAS MUTACIONES EN EL INFLUYEN EN LA SUSCEPTIBILIDAD, SIENDO LOS CERDOS CON GENOTIPO FUT1AA RESISTENTES, MIENTRAS QUE AQUELLOS CON GENOTIPOS FUT1GA O FUT1GG SON SUSCEPTIBLES
OBJETIVO DEL ESTUDIO
Este estudio tuvo como objetivo evaluar el efecto de un aislado contemporáneo de E. coli F18 de alta virulencia en cerdos con diferentes genotipos de FUT1.
METODOLOGÍA
Veinte cerdos de 21 días (10 susceptibles y 10 resistentes) fueron seleccionados y alojados en condiciones controladas en la Universidad Estatal de Iowa.
Tras una fase de aclimatación, todos los cerdos fueron inoculados con un aislado de E. coli F18 y se monitorizaron diariamente en cuanto a la severidad de la diarrea y la excreción de la bacteria a través de muestras fecales.
Inoculación con
FIGURA 1
Diseño experimental del estudio en el que se evaluó el efecto de un aislado de E. coli F18 en lechones con diferente genotipo del gen FUT1. Veinte lechones de 21 días fueron distribuidos en dos grupos: resistentes (FUT1AA; n = 10) y susceptibles (FUT1GA/GG; n = 10). Tras la inoculación con E. coli F18, se realizó un seguimiento diario de la severidad de la diarrea y de la excreción fecal de la bacteria.
Genotipo FUT1AA
10 lechones resistentes a E. coli F18
Genotipo FUT1GA o FUT1GG
Severidad de la diarrea
10 lechones sensibles a E. coli F18

Excreción fecal de E. coli
Los resultados mostraron que, aunque no hubo diferencias significativas en la excreción de E. coli entre ambos grupos, el grupo susceptible presentó una puntuación fecal más alta, lo que indica una mayor severidad de la diarrea.
Además, se observó una tasa de mortalidad notablemente mayor en el grupo susceptible, mientras que los cerdos resistentes no presentaron mortalidad alguna.
El análisis histológico reveló que ninguno de los cerdos resistentes mostró colonización por E. coli en el intestino delgado, en contraste con el 90 % de los cerdos susceptibles, que sí la presentaron.
Este estudio confirma que la resistencia genética a E. coli F18 es efectiva frente a aislados contemporáneos de alta virulencia.
Los cerdos con genotipo resistente no mostraron signos de enfermedad, mientras que los susceptibles presentaron cuadros clínicos severos, incluyendo mortalidad y lesiones histológicas.
La investigación sugiere que, a pesar de la continua exposición ambiental a E. coli, los mecanismos genéticos de resistencia pueden ofrecer una vía prometedora para la mejora de la salud porcina y el manejo de enfermedades asociadas. La comprensión de estos factores genéticos es crucial para el desarrollo de estrategias efectivas en la industria porcina.
“Las conclusiones de este artículo subrayan la creciente relevancia de la resistencia genética en la lucha contra enfermedades en cerdos, especialmente en un contexto en el que se está reduciendo el uso de aditivos como el óxido de zinc y los antibióticos. En particular, las diarreas colibacilares en la fase de postdestete son un reto para la industria porcina y la selección genética de líneas resistentes es ya en la actualidad una herramienta fundamental para mejorar la salud animal, la sostenibilidad del sector y la productividad de las granjas.
En el caso de PIC, este gen de resistencia forma parte de los criterios actuales de selección, y ya observamos altas prevalencias en varias de nuestras líneas, lo que refuerza el impacto real y aplicado de esta herramienta genética en campo para mejorar la robustez de los animales y su bienestar”. - Pablo Magallón Verde, director de Servicios Técnicos PIC Sur y Norte de Europa.
Tanto si buscas optimizar costes con la Camborough® como maximizar la productividad con la PIC®X54, PIC® te ofrece soluciones genéticas personalizadas. Como el único proveedor que lidera ambos segmentos, nuestras hembras destacan por su rentabilidad, facilidad de manejo, bienestar, resiliencia sanitaria e innovación preparada para el futuro. Porque los productores de hoy no deberían elegir entre dos caminos para lograr su éxito: Pueden dominar ambos. Descubre más en es.pic.com


Mª Jesús Serrano Andrés, María Mei Martínez de Zuazo, Rafael Pagán Tomás y Laura María Espina Cadena Departamento de Producción Animal y Ciencia de los Alimentos, Universidad de Zaragoza, Instituto Agroalimentario de Aragón IA2
n los últimos años, la resistencia a los antimicrobianos ha pasado de ser una preocupación clínica a convertirse en un desafío transversal que implica también al medio ambiente y a los sistemas productivos. En este contexto, los purines porcinos han emergido como un elemento de interés científico, no solo por su valor agronómico, sino por su posible papel en la dinámica de las resistencias. Este artículo aborda esta cuestión desde una perspectiva aplicada, apoyándose en los resultados del proyecto Puribiotic para aportar una visión basada en datos, alejada de interpretaciones simplistas y centrada en la gestión práctica y sostenible del sistema productivo.
Descarga el PDF
PLa resistencia a los antimicrobianos (RAM) es reconocida actualmente como uno de los grandes retos sanitarios a escala global.
Organismos internacionales como la Organización Mundial de la Salud (OMS), la FAO y la Organización Mundial de Sanidad Animal (OMSA, anteriormente OIE) coinciden en señalar que se trata de un fenómeno complejo, multifactorial y estrechamente ligado a la interacción entre animales, personas y medio ambiente.
Este planteamiento integral se recoge en el enfoque One Health, cada vez más presente en la investigación y en la toma de decisiones en sanidad animal.
En el sector porcino, los esfuerzos realizados durante la última década para reducir el uso de antibióticos y mejorar las estrategias de prevención sanitaria han sido significativos y medibles.
Paralelamente, el foco científico se ha ampliado hacia otros compartimentos del sistema productivo, especialmente el medio ambiente, entendido no como un elemento pasivo, sino como un ecosistema dinámico capaz de influir en la persistencia y circulación de bacterias y genes de resistencia.
En este contexto, los purines porcinos han suscitado un creciente interés científico.
Se trata de un subproducto inevitable de la producción ganadera y, al mismo tiempo, de un recurso agronómico esencial por su aporte de nutrientes y su contribución a la sostenibilidad de los sistemas agrícolas.
Desde el punto de vista microbiológico, los purines contienen una comunidad bacteriana compleja, en gran medida procedente del tracto intestinal de los animales, junto con microorganismos ambientales.
(García-Solache y Rice, 2019)
La detección de genes de resistencia en purines o en suelos fertilizados no debe interpretarse de forma automática como un riesgo sanitario.
La presencia de material genético asociado a resistencias no implica necesariamente su expresión, su transferencia efectiva ni su impacto sobre la salud animal o humana.
Comprender esta diferencia es clave para evitar interpretaciones simplistas o alarmistas.
El proyecto Puribiotic se desarrolló con el objetivo de aportar datos científicos obtenidos en condiciones representativas de la práctica real, que permitan interpretar con mayor rigor el papel de los purines porcinos en la dinámica ambiental de las resistencias antimicrobianas.
Su planteamiento parte de una premisa clara: generar conocimiento para mejorar la gestión y reforzar la prevención, sin cuestionar prácticas fundamentales para la sostenibilidad del sector.
El objetivo general del proyecto Puribiotic fue caracterizar la microbiota y el conjunto de genes de resistencia a antimicrobianos (resistoma) presentes en purines porcinos y analizar su posible relación con suelos agrícolas fertilizados con estos subproductos.
De forma específica, los objetivos planteados fueron:
Describir la composición microbiana de purines porcinos procedentes de explotaciones comerciales.
Analizar la microbiota de suelos agrícolas antes y después de la aplicación de purines.
Identificar los principales genes de resistencia a antimicrobianos detectables en purines y suelos.
Comparar perfiles microbianos y de resistencias entre matrices y momentos de muestreo.
Interpretar los resultados desde una perspectiva aplicada, orientada al veterinario y a la gestión práctica del sistema productivo.
Y MÉTODOS
DISEÑO EXPERIMENTAL Y MUESTREO
DISEÑO EXPERIMENTAL Y MUESTREO
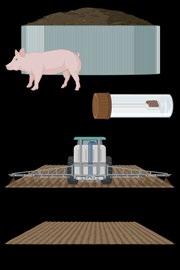
El estudio se llevó a cabo a partir de muestras de purines porcinos procedentes de granjas comerciales y de suelos agrícolas fertilizados con dichos purines.
Las parcelas seleccionadas representaban sistemas de manejo habituales, tanto en dosis de aplicación como en calendarios de fertilización, lo que permitió trabajar en condiciones próximas a la realidad productiva.
Las muestras de suelo se recogieron en distintos momentos, incluyendo muestreos previos a la fertilización y posteriores a la aplicación de purines. Este diseño permitió:
Evaluar posibles variaciones atribuibles a la fertilización.
Analizar la evolución temporal del sistema suelo–purín.
ANÁLISIS METAGENÓMICO Y BIOINFORMÁTICO
ANÁLISIS METAGENÓMICO Y BIOINFORMÁTICO
La caracterización de la microbiota y del resistoma se realizó mediante técnicas de secuenciación metagenómica de alto rendimiento.
Este enfoque permite analizar de forma global las comunidades microbianas presentes en una muestra sin necesidad de cultivo previo, ofreciendo una visión amplia de la diversidad bacteriana y de los genes de resistencia potencialmente presentes.
Las lecturas obtenidas se sometieron a procesos de control de calidad y análisis bioinformático mediante herramientas ampliamente validadas (Bolger et al., 2014), así como para la asignación taxonómica (Wood et al., 2019).
La identificación de genes de resistencia se llevó a cabo utilizando bases de datos especializadas en resistencias antimicrobianas, ampliamente empleadas en estudios ambientales y agroganaderos (Yin et al., 2022).
FIGURA 1
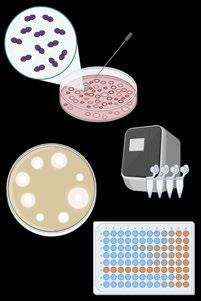
Esquema del diseño experimental y flujo de trabajo del estudio, desde el muestreo de purines porcinos y suelos agrícolas en distintos momentos hasta su análisis mediante secuenciación metagenómica, procesamiento bioinformático, aislamiento bacteriano y caracterización fenotípica de resistencias antimicrobianas.
AISLAMIENTO BACTERIANO Y CARACTERIZACIÓN FENOTÍPICA
AISLAMIENTO BACTERIANO Y CARACTERIZACIÓN FENOTÍPICA
De forma complementaria al análisis metagenómico, se realizaron aislamientos bacterianos mediante cultivo en medios selectivos.
ENTEROCOCCUS SPP
Los aislados se identificaron mediante técnicas moleculares y se evaluó su perfil de sensibilidad antimicrobiana frente a distintos antibióticos de uso habitual en sanidad animal, lo que permitió correlacionar los datos genéticos con resistencias expresadas a nivel fenotípico.
Purines porcinos
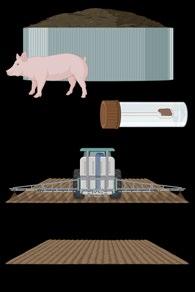
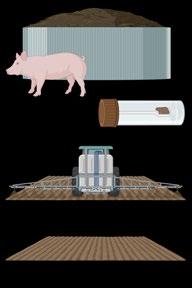
Suelos agrícolas antes de la aplicación de purines
ANÁLISIS METAGENÓMICO Y BIOINFORMÁTICO
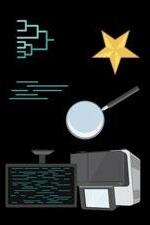
Control de calidad
Análisis bioinformático
Asignación taxonómica
Suelos agrícolas antes de la aplicación de purines
AISLAMIENTO BACTERIANO
CARACTERIZACIÓN FENOTÍPICA
Técnicas moleculares Per les de sensibilidad antimicrobiana
RESULTADOS DEL PROYECTO PURIBIOTIC
MICROBIOTA DE LOS PURINES PORCINOS
MICROBIOTA DE LOS PURINES PORCINOS
El análisis metagenómico mostró que los purines porcinos presentan una microbiota dominada por bacterias de origen intestinal. Entre los géneros más abundantes se encontraron:
Este perfil es coherente con la fisiología digestiva del cerdo y con lo descrito previamente en estudios realizados en purines y otros residuos ganaderos.
Junto a estos géneros predominantes, se detectó una fracción diversa de bacterias ambientales, lo que pone de manifiesto la complejidad del purín como matriz biológica y su carácter dinámico.
MICROBIOTA DE LOS SUELOS AGRÍCOLAS
MICROBIOTA DE LOS SUELOS AGRÍCOLAS
Los suelos agrícolas analizados presentaron una microbiota altamente diversa, característica de ecosistemas edáficos maduros. Los principales grupos bacterianos detectados pertenecieron a filos típicamente asociados al suelo, con una elevada estabilidad entre los distintos muestreos.
DRÁSTICOS
ESTRUCTURA GLOBAL DE LA MICROBIOTA DEL SUELO
Las variaciones detectadas fueron, en general, moderadas y transitorias, lo que indica que la comunidad microbiana del suelo actúa como un sistema amortiguador frente a la entrada de microorganismos externos.
GENES DE RESISTENCIA A ANTIMICROBIANOS EN PURINES
GENES DE RESISTENCIA A ANTIMICROBIANOS EN PURINES
En las muestras de purín se detectó la presencia de diversos genes de resistencia a antimicrobianos, principalmente asociados a tetraciclinas, macrólidos y, en menor medida, aminoglucósidos (Hou et al., 2015; Van Duijkeren et al., 2019; Sazykin et al., 2021).
Este perfil coincide con el descrito en otros trabajos realizados en sistemas ganaderos y refleja el uso histórico de estos antimicrobianos.
La detección de estos genes se realizó a nivel de ADN ambiental, lo que implica la presencia de material genético, pero no aporta información directa sobre su expresión ni sobre su impacto funcional.
GENES DE RESISTENCIA EN SUELOS FERTILIZADOS
GENES DE RESISTENCIA EN SUELOS FERTILIZADOS
En los suelos agrícolas, la detección de genes de resistencia fue notablemente inferior a la observada en purines.
Tras la fertilización, algunos de los genes identificados en purines pudieron detectarse también en muestras de suelo, aunque generalmente en niveles bajos y dentro de un contexto de elevada diversidad microbiana.
La comparación entre suelos antes y después de la fertilización mostró que las diferencias, cuando existían, eran sutiles y no generalizadas a todas las parcelas ni a todos los genes analizados.
AISLAMIENTOS BACTERIANOS Y RESISTENCIAS FENOTÍPICAS
AISLAMIENTOS BACTERIANOS Y RESISTENCIAS FENOTÍPICAS
El aislamiento bacteriano permitió recuperar cepas pertenecientes a Enterococcus, Staphylococcus y enterobacterias, tanto en purines como en suelos.
En algunos aislados se observaron resistencias fenotípicas frente a determinados antibióticos, en consonancia con los genes identificados mediante metagenómica.
Estos resultados confirman que parte del resistoma detectado corresponde a bacterias viables, aunque no aportan información directa sobre su persistencia a largo plazo ni sobre su capacidad de transferencia en el medio ambiente.
DISCUSIÓN
INTERPRETACIÓN DE LOS RESULTADOS EN EL CONTEXTO AMBIENTAL
INTERPRETACIÓN DE LOS RESULTADOS EN EL CONTEXTO AMBIENTAL
Los resultados del proyecto Puribiotic confirman que los purines porcinos pueden actuar como reservorio de genes de resistencia a antimicrobianos, un hecho coherente con su origen biológico y con lo descrito en la literatura científica (García-Solache y Rice, 2019).
LA DETECCIÓN DE ESTOS GENES EN SUELOS FERTILIZADOS SUGIERE UNA POSIBLE CONTRIBUCIÓN DE LOS PURINES A LA CIRCULACIÓN AMBIENTAL DE RESISTENCIAS, PERO DEBE INTERPRETARSE DENTRO DE LA COMPLEJIDAD DEL ECOSISTEMA SUELO
Los suelos agrícolas albergan comunidades microbianas altamente diversas y dinámicas, capaces de integrar aportes externos de materia orgánica y microorganismos sin que ello implique necesariamente una alteración persistente del equilibrio microbiano.
PRESENCIA GENÉTICA FRENTE A IMPACTO FUNCIONAL
PRESENCIA GENÉTICA FRENTE A IMPACTO FUNCIONAL
Uno de los aspectos clave a la hora de interpretar estos resultados es diferenciar entre la presencia de genes de resistencia y su relevancia funcional.
LA METAGENÓMICA PERMITE DETECTAR ADN
ASOCIADO A RESISTENCIAS, PERO NO INFORMA DIRECTAMENTE SOBRE SU EXPRESIÓN NI SOBRE SU TRANSFERENCIA EFECTIVA ENTRE BACTERIAS
La transferencia horizontal de genes depende de múltiples factores, como:
La viabilidad bacteriana.
La proximidad entre microorganismos.
La presencia de elementos genéticos móviles.
Las condiciones ambientales.
La simple detección de genes tet o erm en suelos fertilizados no puede interpretarse como evidencia de transmisión activa ni como un riesgo sanitario directo (García-Solache y Rice, 2019; Yin et al., 2022).
IMPLICACIONES AMBIENTALES Y AGRONÓMICAS
IMPLICACIONES AMBIENTALES Y AGRONÓMICAS
Desde un punto de vista ambiental y agronómico, los resultados del proyecto Puribiotic no cuestionan el uso de purines porcinos como fertilizante.
Cuando se aplican siguiendo buenas prácticas agronómicas, los purines se integran en el sistema suelo de forma controlada, aportando nutrientes esenciales y contribuyendo a la sostenibilidad del sistema productivo.
El conocimiento generado por Puribiotic permite contextualizar la presencia de resistencias dentro de este marco, subrayando la importancia de la gestión adecuada de dosis, calendarios y técnicas de aplicación.
LIMITACIONES DEL ESTUDIO Y NECESIDADES FUTURAS
LIMITACIONES DEL ESTUDIO Y NECESIDADES FUTURAS
Como todo estudio científico, el proyecto Puribiotic presenta limitaciones que deben tenerse en cuenta:
El número de explotaciones y parcelas analizadas, aunque representativo, no abarca la totalidad de sistemas productivos.
El análisis metagenómico no permite evaluar la expresión ni la transferencia a largo plazo de los genes detectados.
Estas limitaciones refuerzan la necesidad de continuar investigando mediante estudios longitudinales y enfoques funcionales que permitan profundizar en la dinámica real de las resistencias antimicrobianas en el medio ambiente.
IMPLICACIONES PRÁCTICAS PARA EL VETERINARIO
Desde el punto de vista del veterinario de campo y del asesor técnico, los resultados del proyecto Puribiotic transmiten varios mensajes clave:
La presencia de genes de resistencia en purines no implica un riesgo inmediato ni incontrolado.
El suelo actúa como un ecosistema complejo y amortiguador, capaz de integrar los aportes procedentes de la fertilización orgánica.
El uso responsable de antibióticos en granja sigue siendo la herramienta principal para reducir la presión de selección de resistencias.
Una gestión adecuada de los purines, ajustada a las recomendaciones técnicas, contribuye a minimizar posibles impactos ambientales.
La generación de conocimiento científico permite anticiparse y mejorar las prácticas, reforzando la sostenibilidad del sistema productivo.
ESTE ENFOQUE BASADO EN DATOS CONTRIBUYE
A GENERAR CONFIANZA Y A EVITAR
INTERPRETACIONES ALARMISTAS QUE NO SE CORRESPONDEN CON LA EVIDENCIA CIENTÍFICA
DISPONIBLE
El proyecto Puribiotic aporta una visión integrada y aplicada sobre la presencia de resistencias antimicrobianas en purines porcinos y suelos agrícolas fertilizados. Los purines pueden albergar genes de resistencia y estos pueden detectarse posteriormente en el suelo, pero los datos obtenidos no apuntan a un impacto inmediato ni descontrolado.
Interpretar estos resultados dentro de la complejidad del sistema suelo–purín es esencial para avanzar hacia una gestión cada vez más responsable. Profundizar en este tipo de estudios permite:
Reforzar la sostenibilidad del sector porcino.
Mejorar la toma de decisiones técnicas.
Avanzar en la prevención desde una perspectiva científica y no alarmista.
Proyecto cofinanciado 80 % por la Unión Europea y 20 % por el Ministerio de Agricultura, Pesca y Alimentación. GOP2025001400
BIBLIOGRAFÍA
Bolger, A. M., Lohse, M., & Usadel, B. (2014). Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics, 30(15), 2114–2120.
García-Solache, M., & Rice, L. B. (2019). The Enterococcus: a model of adaptability to its environment. Clinical Microbiology Reviews, 32(2), e00058-18.
Hou, J., Wan, W., Mao, D., Wang, C., Mu, Q., Qin, S., & Luo, Y. (2015). Occurrence and distribution of sulfonamides, tetracyclines, quinolones, macrolides, and nitrofurans in livestock manure and amended soils of Northern China. Environmental Science and Pollution Research, 22(6), 4545-4554.
Sazykin, I. S., Khmelevtsova, L. E., Seliverstova, E. Y., & Sazykina, M. A. (2021). Effect of antibiotics used in animal husbandry on the distribution of bacterial drug resistance. Applied Biochemistry and Microbiology, 57(1), 20-30.
Van Duijkeren, E., Schwarz, C., Bouchard, D., Catry, B., Pomba, C., Baptiste, K. E., ... & Jukes, H. (2019). The use of aminoglycosides in animals within the EU: development of resistance in animals and possible impact on human and animal health: a review. Journal of Antimicrobial Chemotherapy, 74(9), 2480-2496.
Wood, D. E., Lu, J., & Langmead, B. (2019). Improved metagenomic analysis with Kraken 2. Genome Biology, 20, 257.
Yin, X., Zheng, X., Li, L., Zhang, A.-N., Jiang, X.-T., & Zhang, T. (2022). ARGs-OAP v3.0: Antibiotic-resistance gene database curation and analysis pipeline optimization. Science of the Total Environment, 807, 150756.
Adaptación de ESPHM 2025 MM-PP-13 EFFECT OF ORAL VACCINATION ON PERFORMANCE OF PIGLETS INFECTED WITH SALMONELLA TYPHIMURIUM WITHOUT OBVIOUS CLINICAL SIGNS.
C. Casanovas, L. Oliva, I. Tardío Solans, L. Cons, A. Escoda, J. Casanovas Granell, D. Espigares.
almonella spp. es un patógeno ampliamente extendido a nivel mundial y en las explotaciones porcinas españolas, siendo S. Typhimurium uno de los serovares más frecuentemente detectados. Suele provocar enfermedad entérica, con diarrea, mortalidad y retraso del crecimiento; además, también puede causar septicemia.
Esta investigación tuvo como objetivo determinar el efecto del uso de una vacuna comercial frente a S. Typhimurium sobre la mortalidad, la ganancia media diaria (GMD), el control de la diarrea y el porcentaje de lechones retrasados al final de la fase de transición en una granja comercial.
SSalmonella es un patógeno relevante, tanto en salud humana como animal, debido a su implicación en las toxiinfecciones alimentarias.
A pesar de que existen solo dos especies de Salmonella, S. bongori y S. enterica, hay descritos más de 2.600 serotipos en función de su fórmula antigénica (Grimont y Weill, 2007).
Entre todos ellos, los que mayoritariamente causan salmonelosis porcina son:
Salmonella enterica serotipo Typhimurium (S. Typhimurium).
Salmonella enterica serotipo Choleraesuis (S. Choleraesuis).
LAS ESTRATEGIAS DE CONTROL DE SALMONELLA DEBEN ESTAR CIMENTADAS EN TRES PILARES: HIGIENE, BIOSEGURIDAD Y VACUNACIÓN
En este sentido, el objetivo de este trabajo fue evaluar el efecto de una vacuna viva atenuada frente a S. Typhimurium (Salmoporc®, Ceva) sobre la mortalidad y los parámetros productivos en un escenario de sintomatología clínica leve.
El estudio se realizó en una granja de 3.000 cerdas en España que destetaba dos veces por semana, con un historial de lechones al destete que mostraban:
Diarrea amarillenta.
Pérdida de apetito.
Letargo.
Fiebre.
Emaciación
SIGNOS CLÍNICOS
Signos clínicos observados en lechones al destete en una granja de 3.000 cerdas en España, caracterizados por diarrea amarillenta, pérdida de apetito, letargo, fiebre y emaciación.
Los lechones afectados eran negativos a PRRS y PCV2 y, en las necropsias, se detectaron algunas de las siguientes lesiones:
Colitis fibrinonecrótica focal o difusa (ocasionalmente con úlceras).
Mucosa intestinal enrojecida.
Linfonodos inflamados.
Los resultados de laboratorio revelaron la presencia de S. Typhimurium en muestras fecales e intestinales, e incluso en linfonodos mesentéricos en algunos animales.
Colitis fibrinonecrótica
FIGURA 2
Lesiones observadas en necropsias y resultados del análisis laboratorial en lechones negativos a PRRS y PCV2, con detección de S. Typhimurium en muestras fecales, intestinales y linfonodos mesentéricos.
Linfonodos inflamados
Detección de Salmonella Typhimurium en muestras fecales, intestinales y linfonodos mesentéricos.
Se vacunaron dos lotes consecutivos de lechones (1.619 lechones) con una vacuna viva atenuada frente a S. Typhimurium (Salmoporc®, 1 ml por drench) a los 10–14 días de edad, y se compararon con un grupo control de 835 lechones no vacunados.
Los lechones de ambos grupos se alojaron en la misma sala en grupos de 25 lechones.
Los corrales se pesaron individualmente a la salida, obteniéndose 32 réplicas para el control y 64 para el grupo vacunado.
Se utilizó un Modelo Lineal Generalizado para determinar las diferencias estadísticas en mortalidad, GMD y porcentaje de lechones retrasados.
Las diferencias estadísticas se fijaron en p < 0,05.
VACUNACIÓN
1.619
835
(drench) en lechones, comparando el grupo vacunado (1.619
El peso medio inicial al destete de ambos grupos no presentó diferencias significativas (5,08 kg vs 5,07 kg) y la incidencia de diarrea en ambos grupos fue muy baja, con signos clínicos leves.
En cambio, al final de la transición, el peso de los animales vacunados fue 1,6 kg superior (15,1 ± 0,34 kg vs 13,5 ± 0,47 kg, p < 0,001), incluso con mayor tiempo de crecimiento para el grupo control (41 días vs 39,5 días).
Número de lechones 805 1.590
Peso al destete (kg)
Peso de salida (kg)
Número de repeticiones del peso de salida
de destete
Tasa de mortalidad
Retrasados al final del periodo
TABLA 1
5,08 0,01 (NS)
Resultados productivos y sanitarios en lechones vacunados frente a S. Typhimurium en comparación con el grupo control.
S. Typhimurium es una bacteria muy prevalente y potencialmente zoonótica que causa importantes pérdidas en la producción porcina debido a la enfermedad digestiva y, en ocasiones, septicémica que provoca.
Los resultados de este ensayo son especialmente interesantes porque la diarrea estuvo prácticamente ausente en los animales de ambos grupos, manifestando un cuadro clínico muy leve, casi subclínico.
Debido a la alta prevalencia de S. typhimurium en cerdos a nivel mundial, muchas granjas pueden encontrarse en una situación similar a la del estudio, en la que una situación prácticamente subclínica puede pasar desapercibida.
Aun en estas condiciones, la vacunación mediante una única dosis oral alrededor de los 10-14 días de vida con una vacuna comercial frente a S. typhimurium logró mejorar significativamente el crecimiento y reducir la tasa de mortalidad y los lechones retrasados durante la fase de transición.



Dr. Marcelo Gottschalk
Profesor del Departamento de Patología y Microbiología, Facultad de Veterinaria Universidad de Montreal
Descarga el PDF
treptococcus suis sigue siendo uno de los principales desafíos sanitarios en el postdestete, especialmente en un contexto de creciente restricción en el uso de antibióticos y elevada complejidad diagnóstica. Su patogenia está condicionada por múltiples factores —como coinfecciones, estado sanitario o posibles alteraciones del microbioma intestinal— mientras que el papel de las micotoxinas y otros moduladores aún se encuentra en estudio.
Ante este escenario, el diagnóstico fiable y la correcta identificación de cepas realmente virulentas resultan clave, apoyándose en criterios prácticos y herramientas como el MLST. Todo ello obliga a abordar su control desde un enfoque integral que combine diagnóstico riguroso, manejo de factores predisponentes y estrategias de vacunación adaptadas a cada sistema productivo, valorando siempre sus limitaciones y el coste-beneficio de las intervenciones.
Streptococcus suis es uno de los patógenos bacterianos más relevantes del período postdestete en la producción porcina, con distribución mundial y un impacto clínico que incluye:
Meningitis (Imágenes 1 y 2).
Artritis (Imagen 3).
Septicemia con muerte súbita (Imagen 4).
Endocarditis (Imagen 5).
Poliserositis (Imágenes 6 y 7).
IMAGEN 3
IMAGEN 2
Meningitis asociada a S.suis. Encéfalo porcino con congestión vascular y signos de meningitis bacteriana, caracterizados por hiperemia de las meninges con un depósito purulento.
IMAGEN 5
Endocarditis asociada a S. suis. Corazón con vegetaciones valvulares compatibles con endocarditis bacteriana, caracterizadas por la presencia de material fibrinoso e inflamatorio adherido a las válvulas cardíacas.
Artritis asociada a S. suis. Lechón con aumento de volumen articular compatible con artritis, asociado a inflamación de las articulaciones y posible cojera o dificultad para la locomoción.
IMAGEN 6
Poliserositis asociada a S. suis. Cavidad abdominal con exudado fibrinoso y afectación de serosas, compatible con peritonitis fibrinosa dentro de un cuadro de poliserositis.
IMAGEN 1
Meningitis asociada a S. suis. Lechón en decúbito lateral con sintomatología neurológica compatible con meningitis, incluyendo incoordinación y movimientos de pedaleo.
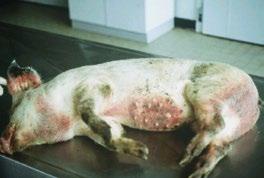
IMAGEN 4
Lesiones compatibles con muerte súbita asociada a endocarditis bacteriana. Se observan lesiones cutáneas hemorrágicas y áreas de eritema difuso, que pueden aparecer en el contexto de procesos septicémicos secundarios, frecuentemente asociados a infecciones por S. suis.
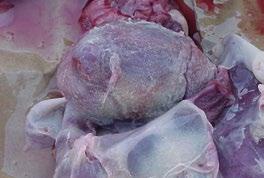
IMAGEN 7
Poliserositis asociada a S. suis. Corazón con depósito de exudado fibrinoso sobre el pericardio, compatible con pericarditis fibrinosa dentro de un cuadro de poliserositis.
Las crecientes restricciones al uso de antibióticos han dificultado aún más su control, lo que obliga a comprender mejor su diagnóstico, epidemiología y las opciones reales disponibles para su prevención.
Aunque originalmente se describieron 35 serotipos, solo 29 corresponden verdaderamente a S. suis, y existe un alto grado de variabilidad regional:
El serotipo 2 sigue siendo el más virulento y el principal agente zoonótico a nivel mundial.
En Europa (incluida España) también destaca el serotipo 9.
En España, además de los serotipos 2 y 9, también se han descrito como relevantes los serotipos 7, 1 y 14.
En Norteamérica predominan los serotipos 1/2 y 1.
Más allá de esta distribución geográfica, no todos los serotipos presentan la misma relevancia clínica, y solo algunos se consideran altamente virulentos.
La tipificación molecular mediante MLST (sequence type, ST) permite afinar esta clasificación, identificando linajes asociados a mayor virulencia, como ST1 (en serotipos 2, 1 y 14), ST123 (en serotipo 9, especialmente en España) o ST29 (en serotipo 7).
Además, es frecuente encontrar múltiples serotipos coexistiendo en una misma granja, no todos necesariamente implicados en enfermedad, y con marcadores de virulencia que aún se encuentran en evaluación.
El diagnóstico adecuado depende en gran medida de una correcta selección de muestras.
S. suis puede aislarse habitualmente de cavidades respiratorias superiores o saliva, por lo que las muestras de tonsilas, cavidad nasal o lavados laríngeos no deben utilizarse para confirmar enfermedad, ya que conducen a interpretaciones erróneas.
Lo mismo ocurre con los pulmones, donde el aislamiento suele estar asociado a infecciones virales como PRRS y no refleja un rol primario.
Para confirmar la implicación de S. suis se requieren muestras de:
Cerebro o LCR en casos de meningitis
Articulaciones completas o líquido articular en casos de artritis
Corazón en casos de endocarditis
Órganos internos como bazo e hígado en casos de septicemia
La dificultad diagnóstica radica en que S. suis está presente en la mayoría de los animales sanos y puede efectuar una invasión postmortem (en animales encontrados muertos, sobre todo en verano), lo que hace necesario determinar si un aislamiento corresponde a una cepa realmente virulenta.
A pesar de que se han descrito más de 100 supuestos factores de virulencia, la mayoría proviene de estudios en ratón y no permite discriminar con seguridad cepas patógenas. Más allá de la cápsula (responsable del serotipo), todavía no existe un factor de virulencia universalmente validado.
DEFINIR UNA CEPA VIRULENTA MARCADORES DE
Para facilitar la toma de decisiones en campo, resulta fundamental apoyarse en criterios prácticos que permitan diferenciar las cepas realmente virulentas de aquellas que forman parte de la microbiota habitual. En este contexto, la interpretación de los aislamientos debe basarse en una combinación de evidencias clínicas, epidemiológicas y de laboratorio, como se resume a continuación:
La repetición del mismo serotipo en aislamientos de órganos internos de distintos animales afectados.
La consideración de los serotipos más relevantes en la región.
La tipificación por MLST, que permite identificar secuencias asociadas a alta virulencia, como ST1 en serotipos 1, 2 y 14 o ST16 y ST123 (este último en España) en serotipo 9.
Esto implica que, en la práctica, el veterinario clínico debe efectuar un número importante de necropsias y enviar órganos o material al laboratorio (al menos 3 animales en 3 ocasiones diferentes).
La genómica completa, aunque permite comparar aislamientos dentro de sistemas piramidales, aún no ofrece marcadores validados que permitan una clasificación definitiva de cepas virulentas.
En cuanto a marcadores de virulencia, se han descrito recientemente ciertos genes presentes en cepas implicadas en casos clínicos en grandes sistemas de producción que parecen ser de interés. Sin embargo, son necesarios más estudios para validarlos en cepas aisladas en distintas regiones del mundo.
La existencia simultánea de varios serotipos dentro de una misma granja complica la toma de decisiones, especialmente cuando se busca producir vacunas autógenas, y las cepas no tipificables suelen ser poco relevantes, salvo en casos de endocarditis.
La vía respiratoria sigue siendo el punto de entrada de S. suis más aceptado, con las tonsilas como principal sitio de colonización en animales sanos y enfermos. No obstante, se está explorando el posible papel del tracto gastrointestinal.
Más allá de la vía de entrada, la aparición de la enfermedad causada por S. suis debe entenderse como el resultado de la interacción de múltiples factores (Figura 1).
La simple presencia de cepas potencialmente virulentas no implica necesariamente la aparición de signos clínicos, ya que el desarrollo de la enfermedad depende de un equilibrio dinámico entre el patógeno, el animal y su entorno.
En este sentido, la virulencia de la cepa (determinada por el serotipo, el tipo de secuencia y la repetición de aislamientos en casos clínicos), los factores ambientales (como ventilación deficiente, elevada carga de polvo, amoníaco o humedad, presencia de micotoxinas, variaciones térmicas y condiciones sanitarias inadecuadas), y los factores de manejo (sobredensidad, dificultades en la adaptación al pienso sólido o prácticas como el corte de dientes o cola) juegan un papel determinante.
A estos elementos se suman los factores del hospedador, como la edad o la presencia y calidad de la inmunidad maternal, así como las coinfecciones, especialmente PRRS e Influenza.
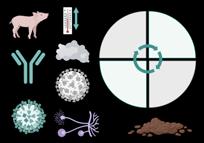
PRRS Influenza


Virulencia de la cepa de S. suis
LA COMBINACIÓN DE TODOS ESTOS FACTORES, FRECUENTEMENTE ASOCIADOS A SITUACIONES DE ESTRÉS, ES LA QUE
FINALMENTE FAVORECE LA TRANSICIÓN DESDE LA COLONIZACIÓN A LA ENFERMEDAD CLÍNICA
Coinfecciones

1
ENFERMEDAD
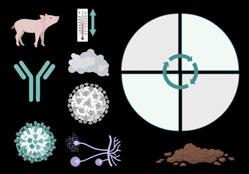

Corte de dientes, cola y/u orejas
de manejo
Factores dependientes del hospedador Factores ambientales



Interacción de factores determinantes en la patogenia de S. suis. El desarrollo de la enfermedad resulta de la interacción entre la virulencia de la cepa, los factores ambientales, los factores de manejo y los factores dependientes del hospedador, modulados además por la presencia de coinfecciones. La combinación de estos elementos, frecuentemente asociada a situaciones de estrés, condiciona la transición desde la colonización hasta la aparición de enfermedad clínica.
Desde un punto de vista patogénico, la enfermedad se desarrolla cuando S. suis es capaz de atravesar las barreras del hospedador y alcanzar el torrente sanguíneo.
A partir de este momento, la capacidad de supervivencia bacteriana y la respuesta inflamatoria del hospedador determinan la evolución del proceso, pudiendo derivar en bacteriemia o septicemia, con manifestaciones como muerte súbita u otros cuadros sistémicos.
En algunos casos, el patógeno es capaz de atravesar la barrera hematoencefálica y alcanzar el sistema nervioso central, dando lugar a meningitis, una de las presentaciones más características de la enfermedad.
La presencia de S. suis en heces probablemente refleje contaminación por saliva más que una verdadera colonización intestinal, aunque estudios experimentales muestran que el patógeno puede alcanzar los ganglios mesentéricos tras inoculación oral. Aun así, sin protección frente al ácido gástrico, S. suis no sería capaz de reproducir la enfermedad por vía oral, al menos en modelos experimentales.
Se ha planteado la hipótesis de que alteraciones del microbioma intestinal o el estrés digestivo podrían favorecer la susceptibilidad sistémica y facilitar posteriormente la invasión por vía respiratoria. Por ello, una buena salud intestinal sería necesaria en las primeras semanas postdestete para reducir el riesgo de enfermedad causada por S. suis.
Aunque la vía respiratoria está ampliamente aceptada como principal puerta de entrada, el posible papel del tracto gastrointestinal sigue siendo objeto de estudio, especialmente en situaciones en las que se producen alteraciones del microbioma o de la integridad intestinal.
Son necesarios más estudios sobre las ventajas sanitarias del uso de estabilizadores de la inflamación intestinal (incluidos probióticos y/o prebióticos) en el control de la enfermedad causada por S. suis.
Algunos estudios recientes sugieren que intervenciones dirigidas frente a otros patógenos entéricos, como Escherichia coli, podrían tener un efecto indirecto sobre la incidencia de infecciones por S. suis, probablemente a través de la mejora del estado intestinal y la reducción de infecciones secundarias. No obstante, estos resultados deben interpretarse con cautela, ya que todavía se requieren más estudios controlados antes de poder establecer recomendaciones firmes en este ámbito.
FIGURA 2
Patogénesis de la infección por S. suis. Tras la colonización, principalmente a nivel del tracto respiratorio y tonsilas, la bacteria puede acceder al torrente sanguíneo y dar lugar a bacteriemia o septicemia. La evolución del proceso depende de la supervivencia bacteriana y de la respuesta del hospedador, pudiendo derivar en muerte súbita, otras patologías sistémicas o la diseminación al sistema nervioso central, donde causa meningitis. El posible papel del tracto gastrointestinal en la infección sigue en estudio.
Colonización por S. suis
Tracto respiratorio
Tonsilas (portador sano)
Tracto gastrointestinal
Circulación sanguínea
Bacteriemia, septicemia
Supervivencia bacteriana
Muerte súbita, otras patologías
Meningitis
Sistema nervioso central (SNC)
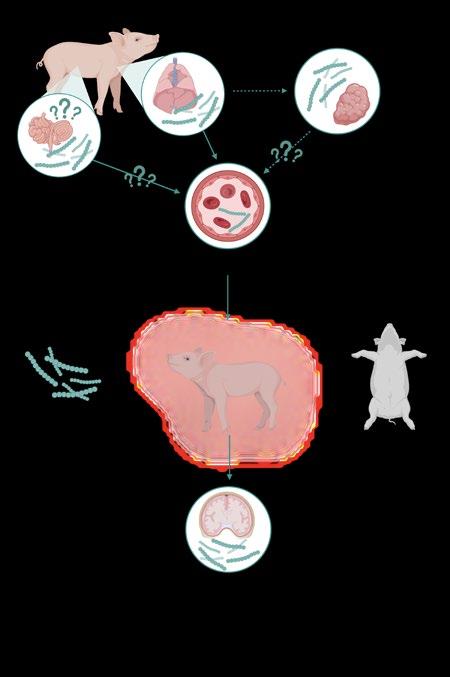
La interacción de S. suis con micotoxinas es un campo de estudio reciente. Experimentos ex vivo utilizando organoides ileales sugieren que el deoxinivalenol (DON) y la toxina T-2 pueden aumentar la translocación de S. suis a través del epitelio intestinal, aunque estos resultados son todavía preliminares y deben ser confirmados.
En estudios in vivo con cerdos infectados experimentalmente no se ha observado un aumento claro de la susceptibilidad sistémica, lo que indica que, aunque estos compuestos pueden afectar la respuesta inmunitaria o la homeostasis intestinal, su impacto real en la infección sistémica por S. suis sigue sin estar completamente definido.
Entre las coinfecciones que agravan el cuadro clínico:
PRRSv continúa siendo el agente patógeno más influyente, seguido por el virus de la Influenza.
Otros agentes como Mycoplasma hyopneumoniae, Mycoplasma hyorhinis, Glaesserella parasuis y PCV2 muestran un efecto no confirmado o muy variable.
El control de la enfermedad causada por S. suis es especialmente complejo en el contexto actual de restricción del uso de antibióticos, lo que obliga a adoptar un enfoque multifactorial basado en el manejo de factores predisponentes y el uso de herramientas disponibles como la vacunación.
En este escenario de aumento de las resistencias antimicrobianas, actualmente se están explorando alternativas como aditivos alimentarios que modulan el microbioma o reducen la inflamación intestinal. Sin embargo, los estudios publicados muestran resultados contradictorios y todavía insuficientes para formular recomendaciones firmes.
En cuanto a la vacunación, existen numerosas líneas de investigación en desarrollo, incluyendo vacunas subunitarias basadas en proteínas, inmunoglobulinas o antígenos recombinantes, así como aproximaciones basadas en azúcares capsulares sintéticos.
Aunque algunos de estos candidatos muestran resultados prometedores, su aplicación práctica aún es limitada.
En la actualidad, las opciones comerciales disponibles son escasas y se centran principalmente en determinados serotipos, como el serotipo 2. Por este motivo, en condiciones de campo, la estrategia más utilizada continúa siendo el empleo de autovacunas (bacterinas).
AUTOVACUNAS
Entre las herramientas disponibles para hacer frente a S. suis, las vacunas autógenas ocupan un lugar central, aunque presentan una variabilidad considerable.
Las diferencias entre laboratorios en métodos de cultivo, concentración bacteriana y tipo de adyuvante (entre otras variables) son determinantes, y la baja inmunogenicidad natural de S. suis agrava el problema.
Los adyuvantes “agua-en-aceite” son los que inducen mejores respuestas, aunque pueden causar reacciones locales y deben utilizarse solo en cerdas.
TABLA 1
Principales factores que contribuyen a la variabilidad en la composición y eficacia de las autovacunas frente a S. suis. Las diferencias en las condiciones de cultivo, la concentración bacteriana, el tipo de inactivación y el uso de adyuvantes, entre otros factores, pueden influir de forma significativa en la respuesta inmunitaria y en los resultados obtenidos en campo.
En situaciones en las que coexisten múltiples patógenos o serotipos en una misma granja, puede resultar difícil optimizar la formulación vacunal.
En estos casos, una estrategia práctica consiste en separar la autovacuna en distintas formulaciones administradas de forma independiente, (una vacuna con S. suis y la otra con otros patógenos) con el objetivo de mantener una concentración adecuada de antígeno y mejorar la respuesta inmunitaria.
Para el veterinario en granja, esto implica que debe informarse con el laboratorio que produce las vacunas sobre cuál es la composición (concentración bacteriana), el adyuvante utilizado y otras variables, con el fin de tener un mejor conocimiento del producto que va a utilizar.
Debe ser consciente de que los productos «A» y «B», fabricados por dos laboratorios distintos con la misma cepa, pueden ser totalmente dispares y dar lugar a resultados diferentes.
Crecimiento bacteriano
Cuerpo de la vacuna
Concentración bacteriana
Monovalente vs Polivalente
Inactivación
Adyuvante
Exponencial vs Estacionario
Medio sólido vs Medio líquido
Medio líquido: ¿agitación? ¿biofermentador?
Composición del medio de cultivo
Condiciones aerobias, microaerofílicas o anaerobias
Bacterias lavadas o bacterias + sobrenadante (¿toxinas?)
Alta vs muy alta
1 vs varios serotipos (¿otras bacterias?)
Formalina vs otros
Tipo de adyuvante: ¿respuesta inmunológica?
¿Concentración vs lesión local?
Uno de los principales interrogantes en el uso de autovacunas frente a S. suis es a quién dirigir la vacunación: cerdas, lechones o ambos.
La vacunación de cerdas permite transferir inmunidad pasiva a través del calostro, aunque su eficacia depende en gran medida de la duración de los anticuerpos maternales y, sobre todo, de la variabilidad en la ingesta de calostro entre lechones, lo que puede comprometer la uniformidad de la protección en el lote.
Tres dosis preparto producen mejores resultados que dos, pero los títulos en los lechones disminuyen rápidamente y la protección en la segunda fase de la transición es muy parcial.
La vacunación de lechones ha mostrado resultados prometedores, ya que estudios recientes demuestran que no existe interferencia significativa con anticuerpos maternales cuando se vacuna a 1 y 3 semanas de edad, y que pueden desarrollar una respuesta activa en presencia de calostro.
La combinación de vacunación de cerdas y vacunación temprana de lechones ofrece los mejores niveles serológicos, aunque su eficacia clínica y coste-beneficio deben seguir evaluándose.
En la práctica, la elección de la estrategia vacunal debe adaptarse a cada sistema productivo, teniendo en cuenta factores como la presión de infección, la edad al destete, la variabilidad en la ingesta de calostro y las características de la autovacuna utilizada.
En conjunto, el control de S. suis requiere:
Un diagnóstico riguroso,
La selección adecuada de aislamientos para vacunas autógenas.
El manejo estricto de factores predisponentes.
Estrategias de vacunación bien adaptadas a cada sistema productivo.
Aunque persisten numerosas limitaciones, los avances recientes en inmunología, coinfecciones y micotoxinas abren nuevas perspectivas para mejorar la prevención de esta importante enfermedad porcina.
Jesús Bollo Bernabé y Alfredo Romero Rodriguez
Departamento de Marketing de MSD
Animal Health
LLa sanidad y la eficiencia productiva son pilares clave para la rentabilidad de las granjas porcinas, especialmente en un contexto de elevada volatilidad del mercado y presión sanitaria. En este escenario, la toma de decisiones
RLa reciente entrada de la Peste Porcina Africana (PPA) en España ha supuesto un duro golpe para el sector porcino, alterando de forma radical el mercado y generando un escenario de incertidumbre sin precedentes.
Veterinarios, productores y propietarios de granjas se encuentran ante una situación en la que la toma de decisiones acertadas es más crucial que nunca.
El descenso abrupto del precio del cerdo y la volatilidad del coste de producción han dejado patente la necesidad de un estratégico basado en la eficiencia y la rentabilidad la viabilidad de las granjas de porcino a corto y largo plazo.
En este contexto de crisis, es fundamental que, aunque parezcan acertadas en un primer momento, pueden comprometer la sanidad y el futuro económico de las granjas.
Tratar de recortar ciertos “gastos”, especialmente en partidas clave como la prevención sanitaria, la reposición de las reproductoras, el personal o la inversión en herramientas eficaces, ha demostrado en el pasado ser un error con consecuencias muy costosas.
La modificación de protocolos de vacunación como la circovirosis porcina o la neumonía enzoótica ha derivado en ocasiones en un empeoramiento de la clínica que ha multiplicado los costes y mermado la productividad.
La experiencia con la vacunación frente a ileítis incluso ante una situación subclínica, una puede traducirse en mejoras tangibles en el índice de conversión y la ganancia media diaria (GMD), mejorando la rentabilidad.
La clave está en mantener todas las inversiones que aporten un retorno positivo, especialmente aquellas que contribuyen a la optimización de recursos (como la mano de obra, gracias a herramientas que simplifiquen y faciliten el manejo).
EL ROI ES EL INDICADOR FUNDAMENTAL PARA EVALUAR CADA DECISIÓN, PERMITIENDO DISCERNIR ENTRE RECORTES QUE SOLO GENERAN AHORRO
APARENTE Y ACCIONES QUE REALMENTE FORTALECEN LA ESTRUCTURA PRODUCTIVA
Herramientas como el calculador de costes que se mencionará a continuación ofrecen, de una manera sencilla y objetiva, la posibilidad de analizar el impacto económico de muchas medidas a los profesionales del sector, facilitando la comparación entre escenarios y la identificación de las inversiones más eficaces.
Desde MSD Animal Health animamos a seguir invirtiendo en soluciones vacunales eficaces y a utilizar el calculador de costes desarrollado a través de SIP Consultors como guía para la toma de decisiones.
La experiencia nos demuestra que, incluso en tiempos adversos, la eficiencia productiva y la sanidad animal son los pilares que sostienen la rentabilidad y el futuro del sector porcino.
Autores de Sip Consultors: Just Font y Joan Rocadembosch
Hay fechas que quedan grabadas en nuestra memoria y, para el sector porcino español y también europeo, el 28 de noviembre de 2025 será una de ellas.
El brote de PPA detectado en la sierra de Collserola ha cambiado radicalmente el mercado del cerdo de nuestro país.
La tendencia ya bajista del precio del cerdo en Mercolleida (-0,515 €/kg en 20 semanas consecutivas) se ha visto gravemente acentuada por la detección de los primeros casos de PPA (otros -0,275 €/kg en 3 semanas), situando en muy poco tiempo el precio de mercado en 1 €/kg, y recuperando posteriormente hasta 1,2 €/kg en el mes de marzo.
A pesar de la recuperación del precio de venta en las últimas semanas, aún se mantiene lejos del coste de producción actual.
Tal y como se muestra en la Gráfica 1, los últimos años del sector han estado marcados por grandes volatilidades en el coste de producción y el precio de venta, generando momentos de estrés financiero y grandes incertidumbres.
Dentro de esta situación general de pérdidas, existen casos particulares muy diversos en función del nivel de coste en el que nos encontremos. En este sentido, es importante destacar que en los últimos años se ha duplicado la diferencia entre las empresas en el coste de producción.
Una buena eficiencia productiva permite:
Minimizar las pérdidas en periodos de mercado desfavorables.
Incrementar la rentabilidad en momentos favorables.
ACTUAL ESTÁ EN ENCONTRARSE BIEN
FINANCIERA FUERTE
Coste €/Kg Venta €/kg ene-20 may-20 sep-20 ene-21 may-21 sep-21 ene-22 may-22 sep-22 ene-23 may-23 sep-23 ene-24 may-24 sep-24 ene-25 may-25 sep-25 ene-26
Todos somos conscientes de que, ante una situación de mercado como la actual, no existen soluciones mágicas. Una vez más, la clave para afrontar este tipo de situaciones es optimizar los recursos.
Optimizar es la capacidad de resolver los problemas de la manera más eficiente posible, es decir, maximizar la producción con la menor cantidad posible de recursos.
Un parámetro que nos permite medir objetivamente la optimización de los recursos es el ROI, una métrica financiera que mide la rentabilidad de una inversión:
ROI = Ganancias - Inversiones Inversiones
GRÁFICA 1
Evolución de coste de producción y precio de venta neto del periodo 2020 - 2026 (febrero). Las Referencias proceden de la base de datos SIP Consultors.
La inversión hace referencia al gasto total para hacer frente a la operación que se quiera realizar.
Esta inversión puede ser:
A largo plazo (ej.: construcción de una nueva instalación).
A corto plazo (ej.: aplicación de un nuevo tratamiento).
Las ganancias pueden proceder de:
Un mayor ingreso (mayor volumen de producción y/o valor en la venta).
Un ahorro en los recursos utilizados (ej.: reducción del índice de conversión en cebo).
ESTA FÓRMULA, CUANTO MÁS ALTO SEA EL VALOR DEL ROI, MÁS INTERESANTE SERÁ LA INVERSIÓN DESDE UN PUNTO DE VISTA ECONÓMICO
< 0 La inversión es superior a la ganancia, no se recupera el total de la inversión No
0 Se recupera la totalidad de la inversión No hay ganancias ni pérdidas Bajo
0 - 1 Se recupera el total de la inversión y puede generar ligeras ganancias Moderado
>1 Se recupera el total de la inversión y genera ganancias importantes Alto
TABLA 1
Interpretación del retorno sobre la inversión (ROI) y su relación con el interés económico de una inversión, en función de la recuperación del capital invertido y las ganancias generadas.
Para comprender mejor la utilidad que puede tener el cálculo del ROI desde un punto de vista práctico, a continuación, se presenta una simulación para valorar el interés económico que tiene un tratamiento con un coste de 1,20 €/cerdo y que permite mejorar algunos de los principales parámetros productivos en la fase de cebo.
Para hacer esta simulación se ha utilizado un calculador de ROI preparado para MSD Animal Health en el que se han incluido las referencias de precio y coste de producción actuales (Tabla 2).
En este ejemplo podemos observar que se trata de un tratamiento muy interesante a nivel económico, ya que tiene un ROI de 3,2. Esto significa que, por cada euro que invertimos en nuestros animales, recuperamos 3,2 euros gracias a la mejora de los resultados.
El motivo es una importante reducción en el coste de producción debido a la mejora en conversión, mortalidad y crecimiento. También contribuye una menor venta de animales como saldos.
Este valor de ROI sería incluso superior en una situación de mercado diferente, donde el margen fuera positivo.
SIMULACIÓN
pienso cebo (€/t)
TABLA 2
Simulación del impacto productivo y económico de la aplicación de un tratamiento en la fase de cebo, mostrando la mejora de parámetros productivos y el retorno sobre la inversión (ROI) obtenido a partir de los datos de coste y precio considerados.
INDEPENDIENTEMENTE DEL PRECIO DE VENTA QUE SE TENGA, LA PRIORIDAD COMO
PRODUCTORES TIENE QUE SER SIEMPRE MAXIMIZAR LA EFICIENCIA
PRODUCTIVA DE LA EMPRESA
Para ello:
Hay que mantener aquellas prácticas que han demostrado ser eficientes y que permiten producir mejor.
Evaluar nuevas iniciativas que tengan un ROI positivo.
Ello permitirá reducir el coste de producción y ser más competitivos:
Reduciendo pérdidas en momentos de mercado desfavorables como el actual.
Incrementando la rentabilidad de la empresa en periodos de precios altos.
Hay que ser conscientes de que la crisis de precio actual se ve agravada por una situación sanitaria complicada en nuestras granjas, que hace aumentar los costes de producción. Además de la problemática generada por las cepas virulentas de PRRS, no hay que perder de vista otras enfermedades como la pleuroneumonía porcina asociada a Actinobacillus pleuropneumoniae, la disentería o la ileítis, que pueden provocar un empeoramiento significativo del estado de salud de nuestros animales durante la fase de crecimiento.
Ante esta situación de mercado, es más importante que nunca optimizar la sanidad en nuestras granjas, mejorando su eficiencia y reduciendo las pérdidas económicas.
Aunque en producción porcina la optimización de recursos debería ser siempre una prioridad, la situación de mercado actual pone aún más de manifiesto su gran importancia.
Ser eficientes permite superar mejor las situaciones de mercado desfavorables.
Sabemos que existe una gran variabilidad en el coste de producción entre productores.
Situarse en un nivel de coste bajo es la clave para dar viabilidad económica a la empresa a medio y largo plazo.
Para mejorar los resultados es necesario medir.
El cálculo del ROI es una herramienta útil para valorar de forma objetiva el interés económico de los diversos procesos e inversiones.
Hay que mantener aquellas prácticas que han demostrado ser eficientes y que permiten producir mejor, así como evaluar nuevas iniciativas que tengan un ROI positivo.
Una mayor eficiencia productiva siempre supondrá una mejora en los resultados de la empresa, independientemente del precio de mercado.


EEn un contexto marcado por la necesidad de reducir el uso de antibióticos y contener la resistencia antimicrobiana, la producción porcina avanza hacia enfoques más integrales en el control de las infecciones bacterianas. En este escenario, los bacteriófagos vuelven a situarse en el foco como una herramienta con potencial, especialmente cuando se combinan con otras estrategias ya consolidadas. Su integración abre nuevas posibilidades para reforzar la eficacia de los programas sanitarios desde una perspectiva más equilibrada y sostenible.
Mario Delgado-García
Sonia Martínez-Martínez
Sandra Sevilla-Navarro
Zaida Carratalá-Parra
Ana Isabel Pastor-Calonge
Alejandro Cid-González
César Gutiérrez-Martín
Óscar Mencía-Ares1
1Grupo BACRESPI, Departamento de Sanidad Animal, Universidad de León, 24071, León, España.
2Centro de Calidad Avícola y Alimentación Animal de la Comunidad Valenciana (CECAV), 12539, Castellón, España
En producción porcina, el uso de antibióticos ha sido históricamente una herramienta clave para el control de las infecciones bacterianas. Sin embargo, este uso ha contribuido a la aparición y diseminación de bacterias resistentes, comprometiendo la eficacia de los tratamientos convencionales (Enshaie et al., 2025).
Ante este problema, se ha establecido un marco regulatorio cada vez más restrictivo respecto al uso de antibióticos.
En la Unión Europea (UE), el Reglamento (UE) 2019/6 prohíbe su uso rutinario y profiláctico en animales productores de alimentos y limita de forma estricta la metafilaxis (European Parliament & Council of the European Union, 2019), reforzándose estas medidas en España mediante el Real Decreto 666/2023.
Estas políticas han contribuido a una reducción superior al 50 % en el uso de antimicrobianos veterinarios en la UE desde 2011, según datos del programa ESVAC de la Agencia Europea del Medicamento (European Medicines Agency, 2023).
En este nuevo escenario, los antibióticos ya no pueden considerarse la única herramienta para el control de las infecciones en la producción porcina, siendo necesario adoptar estrategias integrales basadas en la prevención mediante manejo y bioseguridad interna y externa, optimización del uso de antimicrobianos y la incorporación de herramientas alternativas y complementarias, en línea con el enfoque One Health (McEwen & Collignon, 2018).
FIGURA 1
Ciclo infectivo de un bacteriófago. Se representan los dos principales ciclos de vida: el ciclo lítico, en el que el fago se replica dentro de la bacteria hasta provocar su lisis y la liberación de nuevos viriones, y el ciclo lisogénico, en el que el ADN del fago se integra en el genoma bacteriano (profago) y se replica junto con la célula hospedadora hasta que, en determinadas condiciones, puede reactivarse y entrar en ciclo lítico.
La fagoterapia ha resurgido como una alternativa de interés basada en el uso de bacteriófagos (fagos), virus capaces de infectar y eliminar bacterias de forma altamente específica (Chavan & Purandare, 2025).
Estos virus presentan, principalmente, dos tipos de ciclos de vida (Figura 1):
Ciclo lítico: el fago se multiplica dentro de la bacteria hasta provocar su lisis y liberar nuevas partículas virales.
Ciclo lisogénico: el material genético del fago se integra en el genoma de la bacteria y permanece en estado latente sin lisarla de inmediato.
El fago se adhiere a la célula hospedadora e inyecta su ADN
CICLO LÍTICO
La célula se lisa, liberando nuevos viriones
El ADN del fago se circulariza
Se sintetizan nuevas proteínas y ADN del fago y se ensablan en viriones
Fago
En fagoterapia se emplean exclusivamente fagos con ciclo de vida lítico, ya que permiten eliminar directamente a las bacterias patógenas.
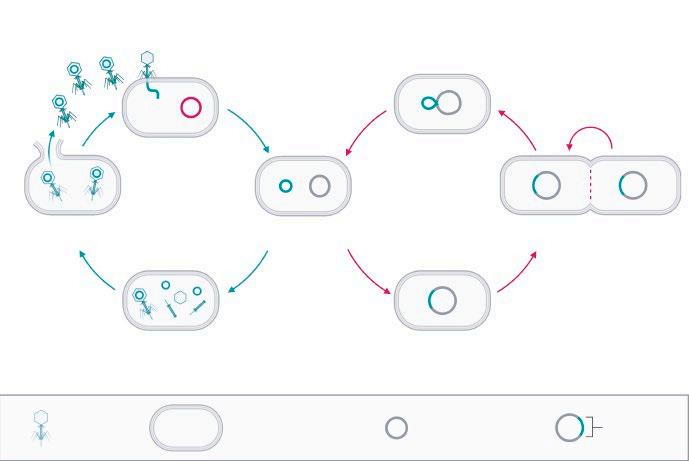
Bacteria
1. Ocasionalmente, el profago se escinde del cromosoma bacteriano y entra en ciclo lítico
CICLO LISOGÉNICO
4b. La bacteria lisogénica se reproduce normalmente
3b. El ADN del fago se integra en el cromosoma bacteriano
Cromosoma bacteriano
Profago
A diferencia de los antibióticos convencionales, los fagos presentan una elevada especificidad y ejercen una menor presión selectiva, lo que reduce el impacto sobre la microbiota y el riesgo de aparición de resistencias antimicrobianas (Gundersen et al., 2023).
03-04
Marzo 2027
ESPAÑA 2027
Lleida, España
09-10
Septiembre 2026
Guadalajara, México
21-22
Octubre 2026
Córdoba, Argentina
¡Escanea el código QR para más información!
La evidencia científica actual indica que el verdadero potencial de la fagoterapia no reside en su uso aislado, sino en su integración con otras estrategias de control, lo que permite maximizar su eficacia antibacteriana.
En este contexto, se han explorado diferentes combinaciones de fagos con compuestos ya empleados en producción animal y en programas de bioseguridad, ampliando así su abanico terapéutico.
ÁCIDOS ORGÁNICOS: CREANDO UN ENTORNO HOSTIL PARA LAS BACTERIAS
Los ácidos orgánicos se utilizan ampliamente en la producción animal por su capacidad para:
Reducir el pH.
Alterar la integridad de la membrana bacteriana.
Interferir con procesos metabólicos esenciales.
Estas condiciones generan un entorno desfavorable para las bacterias y pueden facilitar la acción de los bacteriófagos al mejorar su acceso a las células bacterianas.
Estudios recientes sugieren que el uso de ácidos orgánicos dentro de estrategias de control multifactorial puede potenciar la eficacia de agentes biológicos como los fagos. Este enfoque resulta especialmente atractivo para aplicaciones prácticas en agua de bebida, pienso o tratamientos locales, donde los ácidos orgánicos ya se emplean de forma habitual (Peh et al., 2024).
FAGOS Y DESINFECTANTES: ¿INCOMPATIBLES O COMPLEMENTARIOS?
Los desinfectantes son herramientas clave en los programas de bioseguridad, pero su interacción con los bacteriófagos requiere una evaluación cuidadosa.
Mientras que algunos desinfectantes pueden inactivar rápidamente a los fagos, otros podrían integrarse con la fagoterapia si se seleccionan y aplican adecuadamente.
La investigación disponible indica que elegir el biocida correcto y planificar el momento y el modo de aplicación es fundamental para evitar la inactivación de los fagos y aprovechar su capacidad para reducir bacterias que sobreviven a la limpieza convencional.
Este enfoque abre la puerta al uso de fagos como complemento estratégico en el control ambiental frente a bacterias persistentes (Chen et al., 2024).
COMBINACIÓN DE ANTIBIÓTICOS Y FAGOS: SINERGIA FAGO-ANTIBIÓTICO
Uno de los enfoques más relevantes dentro de las terapias combinadas es la denominada PAS (phage-antibiotic synergy), un fenómeno en el que la combinación de bacteriófagos y antibióticos genera un efecto antibacteriano superior al obtenido con cada agente por separado.
Esta sinergia se ha observado en numerosos sistemas bacteriafago cuando se utilizan antibióticos a concentraciones subletales, es decir, inferiores a las dosis recomendadas. En estas condiciones, algunos antibióticos inducen cambios fisiológicos en las bacterias, como alteraciones en la división celular, que facilitan la infección y la replicación de los fagos.
LA ELIMINACIÓN DE BACTERIAS RESISTENTES Y
ALCANZAR EFECTOS QUE NO SE LOGRAN CON CADA TERAPIA POR SEPARADO (Lee et al., 2025)
VENTAJAS DE LA COMBINACIÓN DE LOS FAGOS CON ANTIBIÓTICOS
VENTAJAS DE LA COMBINACIÓN DE LOS FAGOS CON ANTIBIÓTICOS
La aplicación conjunta de fagos y antibióticos ofrece múltiples beneficios, contribuyendo a mejorar la eficacia global del tratamiento frente a bacterias resistentes (Figura 2).
1
Resensibilización a antibióticos
Una de las principales ventajas es la capacidad para restaurar la sensibilidad bacteriana a los antibióticos y aquellas bacterias que no se eliminen únicamente con antibióticos pueden ser erradicadas cuando se combinan con fagos.
Dosis subletales de antibióticos pueden provocar que las bacterias cambien su forma, facilitando que los fagos se multipliquen dentro de ellas, aumentando así la muerte bacteriana y mejorando la eficacia del tratamiento (Engeman et al., 2021).
2
Fenómeno “trade-off”
Las bacterias pueden desarrollar resistencia a los fagos modificando estructuras como polisacáridos, porinas de membrana, bombas de eflujo o flagelos. Sin embargo, en muchos casos, esta resistencia a los fagos se asocia con una menor virulencia o una mayor sensibilidad a antibióticos, lo que hace a las bacterias más vulnerables al tratamiento antimicrobiano (Mangalea & Duerkop, 2020).
3
Eliminación de biofilms
Combinar fagos y antibióticos también resulta especialmente eficaz frente a los biofilms, o biopelículas, estructuras bacterianas difíciles de eliminar mediante antibióticos convencionales.
Los fagos pueden producir enzimas que degradan la matriz del biofilm, aumentando su permeabilidad y exponiendo las bacterias, lo que favorece la acción del antibiótico (Chegini et al., 2020).
4
Reducción de efectos adversos
La combinación con fagos permite alcanzar una alta eficacia terapéutica usando dosis más bajas de antibióticos, reduciendo así efectos adversos como alteraciones de la microbiota y la aparición de resistencias. Además, la fagoterapia presenta pocos efectos secundarios y el riesgo de aparición de resistencias a fagos puede disminuir cuando se utilizan junto con antibióticos, lo que hace que esta estrategia sea más segura y sostenible (Diallo & Dublanchet, 2022).
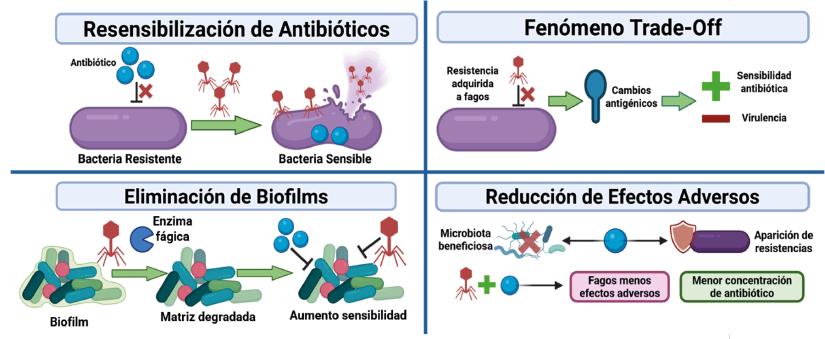
FIGURA 2
Resensibilización de antibióticos
Fenómeno trade-o
Eliminación de bio lms
Reducción de efectos adversos
Principales ventajas de la sinergia fago-antibiótico, incluyendo la resensibilización bacteriana a los antibióticos, el fenómeno trade-off asociado a la resistencia a fagos, la mejora en la eliminación de biofilms y la reducción de efectos adversos mediante el uso de menores dosis de antimicrobianos.
LIMITACIONES DE LA COMBINACIÓN DE FAGOS CON ANTIBIÓTICOS
LIMITACIONES DE LA COMBINACIÓN DE FAGOS CON ANTIBIÓTICOS
Pese a los beneficios previamente mencionados, esta estrategia presenta una serie de limitaciones y desafíos que deben ser considerados antes de su aplicación práctica en producción porcina:
1
Interacciones no siempre sinérgicas
No todas las combinaciones de fagos y antibióticos producen efectos sinérgicos. En algunos casos, los antibióticos pueden interferir con la capacidad de los fagos para infectar bacterias o reducir su multiplicación.
2
Condiciones fisiológicas del huésped
El entorno fisiológico del animal puede afectar la interacción entre el fago, el antibiótico y la bacteria, lo que puede limitar la eficacia esperada al trasladar los resultados obtenidos en estudios in vitro a condiciones de campo.
3 4
Riesgo de aparición de resistencias en otras bacterias
A diferencia de los fagos, que atacan de manera específica a una bacteria concreta, los antibióticos actúan sobre un espectro más amplio de la microbiota.
El uso de dosis subletales puede favorecer la aparición o la diseminación de resistencias en bacterias distintas de la diana, por lo que es fundamental evaluar cuidadosamente su impacto y establecer condiciones de uso seguras antes de su aplicación generalizada.
Limitaciones regulatorias y legales
En la UE, los bacteriófagos se consideran medicamentos veterinarios y están regulados por la normativa general vigente, bajo la supervisión de la Agencia Europea de Medicamentos (EMA). No obstante, en la actualidad no hay ningún fago aprobado para su uso habitual en animales de producción, lo que dificulta su aplicación directa en granja.
En el caso de España, cualquier posible autorización tendría que ser evaluada y aprobada por la Agencia Española de Medicamentos y Productos Sanitarios (AEMPS).
Hasta el momento, la mayor parte de la evidencia sobre la sinergia fagos-antibióticos procede de estudios realizados en patógenos entéricos, principalmente Salmonella y Escherichia coli.
En estos microorganismos se ha observado de forma consistente que la combinación de fagos con antibióticos genera un efecto antibacteriano superior al uso de cada agente por separado. Estas combinaciones permiten:
Reducir de forma notable la carga bacteriana.
Eliminar biofilms resistentes.
En algunos casos, restaurar la sensibilidad de bacterias previamente resistentes a determinados antibióticos (Hasan et al., 2023; Shamsuzzaman et al., 2025).
Aunque muchos de estos trabajos se han realizado en estudios in vitro o en animales pequeños, como ratones, los resultados obtenidos ponen de manifiesto el potencial de los fagos como herramienta complementaria a los tratamientos convencionales basados en antibióticos.
No obstante, esta aproximación no se limita exclusivamente a los patógenos intestinales. En el ámbito del Complejo Respiratorio Porcino (CRP), se han descrito bacteriófagos activos frente a varios de sus principales agentes bacterianos.
En Streptococcus suis, patógeno frecuentemente asociado a meningitis y septicemia en cerdos, se han aislado y caracterizado fagos frente a distintas cepas porcinas, destacando su estabilidad frente a variaciones de pH y temperatura, así como su rango de hospedador relativamente amplio (Osei et al., 2025).
En Pasteurella multocida, implicada en procesos respiratorios y sistémicos, se ha identificado recientemente el fago virulento PMP1, de naturaleza estrictamente lítica y carente de genes asociados a lisogenia, ampliando el conocimiento disponible sobre los fagos que infectan a esta especie (Kim et al., 2025).
En Actinobacillus pleuropneumoniae, agente causal de la pleuropneumonía porcina, se han descrito fagos tipo Mu-like en aislados clínicos porcinos, aunque los estudios realizados hasta el momento se han centrado principalmente en su caracterización (Bartsch et al., 2024).
Además de los patógenos respiratorios, otros agentes bacterianos relevantes en producción porcina también cuentan con bacteriófagos descritos.
En este sentido, Staphylococcus hyicus, causante de la epidermitis exudativa porcina, dispone de fagos aislados y caracterizados a nivel molecular, observándose variabilidad en la susceptibilidad de las cepas a la lisis fágica en estudios realizados en brotes de granja (Tetens et al., 2021).
En conjunto, la identificación y caracterización de bacteriófagos frente a estos patógenos pone de manifiesto que ya existen las bases biológicas necesarias para explorar, en el futuro, estrategias terapéuticas basadas en fagos, incluidas las combinaciones fago-antibiótico, en distintos contextos de la sanidad porcina.
En conjunto, la evidencia disponible muestra que la combinación de bacteriófagos con distintos tratamientos antimicrobianos representa una estrategia prometedora para mejorar el control de las infecciones bacterianas en la producción porcina.
Los mejores resultados se han observado hasta ahora en patógenos entéricos, donde la sinergia entre bacteriófagos y antibióticos ha permitido:
Aumentar la eficacia de los tratamientos.
Reducir la carga bacteriana.
Limitar la aparición de resistencias.
De forma complementaria, el uso de desinfectantes y ácidos orgánicos contribuye a disminuir la presión bacteriana ambiental y a prevenir la colonización y transmisión de patógenos en granja, especialmente cuando se integra en programas de bioseguridad adecuados.
La aplicación directa de estas estrategias combinadas en el cerdo aún se encuentra en una fase inicial, pero la identificación de fagos activos frente a bacterias clave del CRP y otros patógenos de interés sanitario indica que existen bases sólidas para su desarrollo futuro.
En este contexto, estas aproximaciones no deben entenderse como sustitutas de los antibióticos, sino como herramientas complementarias dentro de estrategias integrales de manejo, bioseguridad y uso responsable de antimicrobianos.
El avance de estudios aplicados, adaptados a condiciones reales de granja, será clave para determinar su viabilidad práctica y su contribución a una producción porcina más sostenible y alineada con el enfoque One Health.
BIBLIOGRAFÍA
Bartsch, L. J., Fernandez Crespo, R., Wang, Y., Skinner, M. A., Rycroft, A. N., Cooley, W., Everest, D. J., Li, Y., Bossé, J. T., & Langford, P. R. (2024). PluMu—A Mu-like Bacteriophage Infecting Actinobacillus pleuropneumoniae. Applied Microbiology, 4(1), 520–535. https://doi. org/10.3390/applmicrobiol4010037
Chavan, R., & Purandare, K. (2025). Bacteriophage therapy inspired new age technologies to control antimicrobial resistance. Journal of Umm Al-Qura University for Applied Sciences. https://doi.org/10.1007/s43994025-00231-8
Chegini, Z., Khoshbayan, A., Taati Moghadam, M., Farahani, I., Jazireian, P., & Shariati, A. (2020). Bacteriophage therapy against Pseudomonas aeruginosa biofilms: a review. Annals of Clinical Microbiology and Antimicrobials, 19(1), 45. https://doi.org/10.1186/s12941-020-00389-5
Chen, Z., Yang, Y., Li, G., Huang, Y., Luo, Y., & Le, S. (2024). Effective elimination of bacteria on hard surfaces by the combined use of bacteriophages and chemical disinfectants. Microbiology Spectrum, 12(4). https://doi. org/10.1128/spectrum.03797-23
Diallo, K., & Dublanchet, A. (2022). Benefits of Combined Phage–Antibiotic Therapy for the Control of Antibiotic-Resistant Bacteria: A Literature Review. Antibiotics, 11(7), 839. https://doi.org/10.3390/antibiotics11070839
Engeman, E., Freyberger, H. R., Corey, B. W., Ward, A. M., He, Y., Nikolich, M. P., Filippov, A. A., Tyner, S. D., & Jacobs, A. C. (2021). Synergistic Killing and Re-Sensitization of Pseudomonas aeruginosa to Antibiotics by Phage-Antibiotic Combination Treatment. Pharmaceuticals, 14(3), 184. https://doi.org/10.3390/ph14030184
Enshaie, E., Nigam, S., Patel, S., & Rai, V. (2025). Livestock Antibiotics Use and Antimicrobial Resistance. Antibiotics (Basel, Switzerland), 14(6). https://doi. org/10.3390/antibiotics14060621
European Parliament and the Council of the European Union. (2019). Regulation (EU) 2019/6 of the European Parliament and of the Council of 11 December 2018 on veterinary medicinal products. Official Journal of the European Union. https://eur-lex.europa.eu/eli/reg/2019/6/oj European Medicines Agency. (2023, November 20). Consumption of antimicrobials in animals reaches lowest level ever in Europe. https://www.ema.europa. eu/en/news/consumption-antimicrobials-animals-reaches-lowest-level-ever-europe
European Medicines Agency. (2021, March 18). Quality, safety and efficacy of bacteriophages used as veterinary medicinal products: Scientific guideline (EMA/CVMP/ PhV/819716/2021). https://www.ema.europa.eu/en/quality-safety-and-efficacy-bacteriophages-veterinary-medicines-scientific-guideline
Gundersen, M. S., Fiedler, A. W., Bakke, I., & Vadstein, O. (2023). The impact of phage treatment on bacterial community structure is minor compared to antibiotics. Scientific Reports, 13(1), 21032. https://doi.org/10.1038/ s41598-023-48434-5
Hasan, M., Dawan, J., & Ahn, J. (2023). Assessment of the potential of phage-antibiotic synergy to induce collateral sensitivity in Salmonella Typhimurium. Microbial Pathogenesis, 180, 106134. https://doi. org/10.1016/j.micpath.2023.106134
Kim, G., Park, B., Ji, S., Ferdiansyah, M. K., Kwon, Y., Cha, M., Gaddapara, M., Oh, H., & Kim, K. (2025). Genome sequencing of Pasteurella multocida phage PMP1 elucidates a possible host resistance mechanism and suggests that it belongs to a new species. Archives of Virology, 170(8), 176. https://doi.org/10.1007/s00705025-06357-8
Lee, J.-W., Kim, J., & Kim, S. (2025). Phage-Antibiotic Synergy Review: Mechanisms, Applications, and Future Prospects. Journal of Bacteriology and Virology, 55(2), 91–110. https://doi.org/10.4167/jbv.2025.55.2.091
Mangalea, M. R., & Duerkop, B. A. (2020). Fitness Trade-Offs Resulting from Bacteriophage Resistance Potentiate Synergistic Antibacterial Strategies. Infection and Immunity, 88(7). https://doi.org/10.1128/ IAI.00926-19
McEwen, S. A., & Collignon, P. J. (2018). Antimicrobial Resistance: a One Health Perspective. Microbiology Spectrum, 6(2). https://doi.org/10.1128/microbiolspec. ARBA-0009-2017
Osei, E. K., O’Hea, R., Cambillau, C., Athalye, A., Hille, F., Franz, C. M. A. P., O’Doherty, Á., Wilson, M., Murray, G. G. R., Weinert, L. A., Manzanilla, E. G., Mahony, J., & Kenny, J. G. (2025). Isolation of phages infecting the zoonotic pathogen Streptococcus suis reveals novel structural and genomic characteristics. BioRxiv : The Preprint Server for Biology. https://doi. org/10.1101/2025.01.07.631744
Peh, E., Szott, V., Reichelt, B., Friese, A., Ploetz, M., Roesler, U., & Kittler, S. (2024). Combined application of bacteriophages with a competitive exclusion culture and carvacrol with organic acids can reduce Campylobacter in primary broiler production. Scientific Reports, 14(1), 9218. https://doi.org/10.1038/s41598024-59563-w
Shamsuzzaman, M., Kim, S., & Kim, J. (2025). Therapeutic potential of novel phages with antibiotic combinations against ESBL-producing and carbapenem-resistant Escherichia Coli. Journal of Global Antimicrobial Resistance, 43, 86–97. https://doi. org/10.1016/j.jgar.2025.04.005
Tetens, J., Sprotte, S., Thimm, G., Wagner, N., Brinks, E., Neve, H., Hölzel, C. S., & Franz, C. M. A. P. (2021). First Molecular Characterization of Siphoviridae-Like Bacteriophages Infecting Staphylococcus hyicus in a Case of Exudative Epidermitis. Frontiers in Microbiology, 12, 653501. https://doi.org/10.3389/fmicb.2021.653501
Hazlo fácil
Destetar 1
Administrar 2
Inseminar* 3
*Producir lechones
DESCUBRE CON OvuCalc LOS BENEFICIOS QUE REPRESENTA LA IAU-TF CON TRIPTORELINA
OvuCalc es la app que te permite elegir el programa de IAU-TF más adecuado a tus necesidades, recursos y objetivos, cuantificando los beneficios según el programa elegido.
Introduce los datos que te va pidiendo la aplicación y descubre el programa que mejor se adapta a tu granja.
CONTROLA EL CALENDARIO DE REPRODUCCIÓN
Hazlo fácil con
AHORRA TIEMPO Y TRABAJO
Pregunta a tu delegado Vetoquinol por
REDUCE EL ESTRÉS LABORAL
Vacuna bivalente intradérmica sin aguja frente a Circovirus porcino tipo 2 y M. hyopneumoniae.
Controla hasta
patologías con 4 dispositivo IDAL® 1
Posibilidad de mezclar con Porcilis® Lawsonia ID y/o aplicarse de forma simultánea con Porcilis® PRRS.