
Matèria de modalitat
Matèria de modalitat Ciències i Tecnologia
Ciències i Tecnologia
2n BATXILLERAT
Matèria de modalitat Ciències i Tecnologia
Matèria de modalitat Ciències i Tecnologia
2n BATXILLERAT
Unitat 1. La biosfera 7
1. La biosfera .
2. La biodiversitat
3. Els factors ambientals i l’adaptació .
4. La llum i l’adaptació
5. La temperatura i l’adaptació .
6. L’aigua i l’adaptació
7. La biogeografia . .
8. Mecanismes de dispersió
9. Activitats finals .
10. Activitats d’avaluació
.8
.9
.12
.14
.16
.19
.23
.29
.33
.36
Unitat 2. La nutrició dels éssers vius i les relacions tròfiques 39
1. La nutrició de les plantes verdes . . . . . . . . . .40
2. La nutrició dels fongs i dels bacteris
3. La nutrició dels animals .
4. Les relacions interespecífiques
.43
.45
.47
5. Els nivells tròfics i les relacions tròfiques . . . .59
6. La dinàmica i la producció dels ecosistemes .61
7. Activitats finals
8. Activitats d’avaluació
Unitat 3. Els ecosistemes en l’espai i en el temps
1. La successió ecològica
2. El clímax
3. Biomes .
4. Els cicles biogeoquímics
5. El flux d’energia
6. Activitats finals
7. Activitats d’avaluació
8. Pràctiques de laboratori
.66
.70
73
.74
.78
.84
.97
.102
.106
.108
.111
Unitat 4. Les activitats humanes i la biosfera 121
1. L’ésser humà i la distribució de les espècies
2. La biologia i l’economia. La producció d’aliments . .
3. Activitats finals
4. Activitats d’avaluació
Unitat 5. Els procariotes i els virus. Microbis i salut . . .
1. Les cèl·lules procariotes
2. Els virus .
3. Microbis i salut
.122
.131
.143
.150
. . 153
.154
.163
.172
4. Els prions i les vaques boges . . . . . . . . . . . .190
5. El sistema immunològic . .
6. Activitats finals . . . .
7. Activitats d’avaluació . . . . . . .
8. Pràctiques de laboratori . .
.194
.206
.207
.209
Unitat 6. Panorama del metabolisme 213
1. El metabolisme i les vies metabòliques . . . .214
2. Aspectes energètics del metabolisme . . . . . .216
3. Els agents biològics oxidants i els reductors .
.219
4. El metabolisme aeròbic i l’anaeròbic . . . . .220
5. Els enzims: catalitzadors biològics . . . . . . .221
6. Activitats finals .
7. Activitats d’avaluació
8. Pràctiques de laboratori
.229
.231
.232
Unitat 7. Els glúcids i els lípids . . . . 235
1. Els glúcids .
2. Els lípids .
3. Activitats finals
4. Activitats d’avaluació .
5. Pràctiques de laboratori
.236
.250
.266
.268
.270
Unitat 8. El metabolisme degradatiu 279
1. El catabolisme dels glúcids .
2. El catabolisme dels lípids
3. El catabolisme dels aminoàcids .
.280
.291
.294
4. El catabolisme dels àcids nucleics . . . . . . . .296
5. Activitats finals
6. Activitats d’avaluació . . . .
7. Pràctiques de laboratori
Unitat 9. La fotosíntesi. Aspectes generals de l’anabolisme
1. Tipus i etapes de la fotosíntesi .
2. Els pigments fotosintètics .
.298
.301
.302
305
.306
.309
3. La fase fotoquímica. Flux electrònic, formació del NADPH i fotofosforilació . . .311
4. La fase biosintètica. La fixació del CO2 i el cicle de Calvin
5. La fotosíntesi del nitrogen
.315
.319
6. Rendiment i regulació de la fotosíntesi . . . .320
7. Aspectes generals de l’anabolisme . . . . . . . .323
8. Activitats finals . .
9. Activitats d’avaluació
10. Pràctiques de laboratori
.329
.330
Unitat 10. La teoria i les proves de l’evolució
1. Història de les idees evolucionistes
2. Les proves de l’evolució
3. Activitats finals
4. Activitats d’avaluació
Unitat 11. L’origen i la història de la vida .
337
.338
.350
.356
.358
361
1. La generació espontània no existeix . . . . .362
2. Teories biològiques sobre l’origen de la vida
.363
3. Història de la Terra i de la biosfera . . . . .369
4. La paleontologia i els fòssils
5. Activitats finals
6. Activitats d’avaluació
7. Pràctiques de laboratori
.380
.386
.387
.390
Unitat 12. Els mecanismes evolutius 393
1. L’eficàcia biològica i la genètica de poblacions
2. Els agents evolutius .
3. La selecció natural .
.394
.397
.403
4. La coevolució . . . . . . . . . .
.408
5. L’especiació o formació de noves espècies418
6. La classificació dels organismes . . . . . . . .425
7. Activitats finals . .
8. Activitats d’avaluació . . . .
.430
.434
Unitat 13. L’evolució humana: l’hominització 439
1. Els primats .
2. Característiques diferencials dels humans. L’hominització
3. Les dades paleontològiques
4. El gènere Homo . .
5. Activitats finals
6. Activitats d’avaluació
Apèndix
.446
.453
Nota dels autors
El nou currículum de la Generalitat de Catalunya és clar a l’hora d’establir els continguts conceptuals que s’han de tractar a primer i els que s’han d’estudiar a segon. D’acord amb el currículum, els autors vam decidir introduir els temes d’immunologia en el llibre de primer, en la unitat en què es treballa la coordinació i especialització cel·lulars. Ara, ens ha semblat oportú reproduir aquelles mateixes pàgines d’introducció al sistema immune en el llibre de segon, en aquest cas en la unitat en què s’estudien els procariotes i els virus i, més concretament, en el context de les relacions dels microorganismes amb la salut i la malaltia.
Pàgina inicial: pàgina que presenta els diversos continguts de la unitat.
Introducció: text breu que contextualitza el que s’explicarà en la unitat.
Esquema: índex amb els punts principals tractats en la unitat.
El contingut de la unitat està estructurat en apartats i subapartats numerats que permeten una millor ordenació de l’estudi.
Apartats: numerats i amb un títol indicatiu.
Citació: cada unitat està encapçalada per un fragment d’un text d’alguna personalitat.
www: indicació per marcar que en l’adreça www.espaibarcanova.cat hi ha enllaços per completar la informació.
Documents: textos que amplien el contingut.
Fotografies: documentades i d’absolut rigor.
Dibuixos: elements gràfics que ajuden a la comprensió del text.
Paraules en negreta: paraules que identifiquen els conceptes que cal retenir.
Quadres de text: informació addicional.
Taules i esquemes: elements gràfics que ajuden a la comprensió del text.
Activitats: cada apartat presenta una proposta d’activitats,identificades amb el número d’unitat i el número correlatiu d’activitat.
El tancament de la unitat consta dels elements següents:
Activitats finals: activitats per treballar alguns dels aspectes tractats en la unitat. La numeració és consecutiva a la resta d’activitats de la unitat.
Activitats d’avaluació: activitats per avaluar l’assoliment dels continguts de la unitat.
Recorda: textos breus que reforcen conceptes importants.
Pràctiques de laboratori: activitats experimentals per fer al laboratori.
1. La biosfera
2.La biodiversitat
3.Els factors ambientals i l’adaptació
4.La llum i l’adaptació
5.La temperatura i l’adaptació
6.L’aigua i l’adaptació
7.La biogeografia
8.Mecanismes de dispersió
L’element definidor de la biodiversitat és la riquesa genètica, resultat de l’evolució biològica.
La biosfera és la coberta viva de la Terra, és a dir, el conjunt de la matèria viva i la limitada capa que hi ha al voltant de la superfície del planeta Terra, on és possible la vida. El terme biosfera va ser usat per primera vegada pel geòleg austríac Eduard Suess l’any 1875, però no va ser fins al 1926 que el químic i naturalista rus Vladimir Ivanovitx Vernadsky en va definir la dimensió actual, globalitzadora. Vernadsky es referia, per exemple, a la diversitat d’organismes «transformadors que fan que les radiacions còsmiques es converteixin en energia terrestre activa».
El pitjor que pot passar no és l’esgotament de l’energia, el col·lapse econòmic, la guerra nuclear limitada o l’expansió d’un govern totalitari. Aquestes catàstrofes serien terribles per a l’ésser humà, però es poden reparar en el transcurs d’unes quantes generacions. L’únic procés que necessitarà milions d’anys per ser corregit és la pèrdua de diversitat genètica i d’espècies a causa de la destrucció dels hàbitats naturals. Els nostres descendents probablement no ens perdonaran una relliscada tan gran.
L’ecologia s’ocupa de l’estudi de la biosfera, juntament amb una gran diversitat de ciències de la vida i de la terra. Estudiar la biosfera vol dir estudiar la matèria viva, els organismes i l’espai que ocupen. Implica, també, preguntar-se en quines condicions ocupen aquest espai i quines estratègies desenvolupen per adaptar-s’hi.
La biosfera és, en realitat, una capa relativament prima, ja que la major part dels éssers vius es concentren, a la terra emergida, en altituds no superiors als 3000 o 4000 metres. Més amunt les dificultats són més grans: la temperatura és molt baixa, l’atmosfera es fa més enrarida i l’aigua es congela. Al mar hi ha més vida a la zona il·luminada, fins a 100 o 200 metres de fondària. Més avall, com que no hi ha llum, no hi pot haver plantes.
Ara bé, fins i tot a les grans profunditats abissals hi ha vida (no vegetal, és clar), així com n’hi ha als cims més elevats. Tot i que el límit superior de la vegetació se situa cap als 6200 metres, alguns petits insectes que viuen de les partícules de pol·len portades pel vent i algunes aranyes que s’alimenten d’aquests insectes arriben més amunt.
També a l’atmosfera lliure hi ha formes vivents que, normalment, hi són arrossegades de manera passiva. Es tracta sobretot de microbis i gèrmens d’una gran diversitat d’animals i de vegetals que, a vegades, són transportats a distàncies molt considerables. De fet, cal situar el llindar superior de la biosfera a l’estratosfera, a uns 15000 metres d’altitud, a sota mateix del límit inferior de la capa d’ozó, que és la que protegeix els éssers vius de les radiacions ultraviolades provinents del Sol.
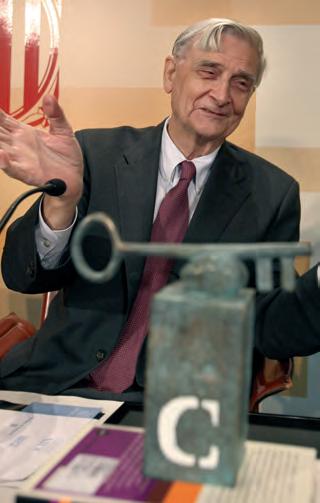
El biòleg nord-americà Edward O. Wilson és conegut per haver estudiat el sistema de comunicació de les formigues i per la seva tasca en pro de la biodiversitat.
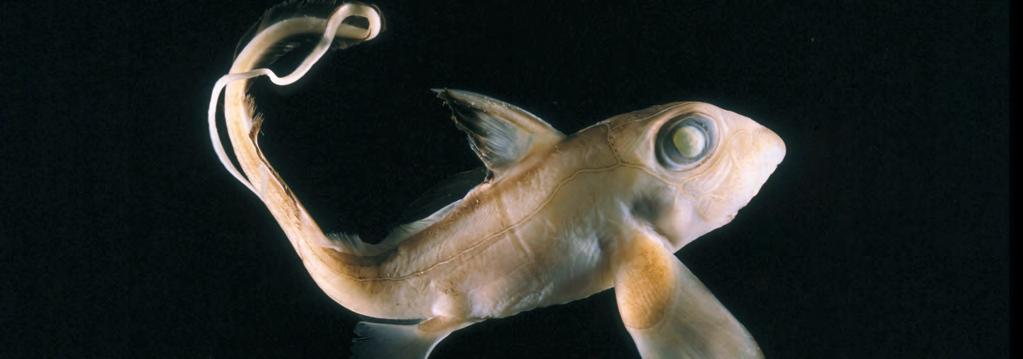
Chimaera monstruosa, peix que viu a les profunditats abissals.
Charles R. Darwin (1809-1882) és l’autor de la primera formulació completa de la teoria de l’evolució, L’origen de les espècies, publicada l’any 1859.
1.1. L’origen de la biosfera: l’evolució biològica
Si bé cada cop coneixem amb més detall la naturalesa cel·lular i molecular dels éssers vius i els diferents aspectes del seu organisme (la fisiologia, la genètica…), ens resulta més difícil conèixer com s’ha originat la vida i com ha arribat a ser tal com la coneixem en l’actualitat.
Tanmateix, els fòssils i els estudis de geologia històrica, com també més modernament els coneixements de bioquímica i genètica derivats de l’anàlisi molecular dels éssers vius, ens il·lustren sobre la història de la vida, per bé que determinats fenòmens relacionats amb el passat de la vida són, pel fet de ser històrics i remots, irrepetibles i, per tant, no comprovables amb els mateixos criteris i procediments de verificació usats en les ciències experimentals. Per aquesta raó, algunes qüestions relatives a l’origen de la vida continuen sent objecte de controvèrsia, si bé molts altres aspectes s’aborden des d’una perspectiva experimental. En qualsevol cas, però, la ciència de la biologia es fonamenta en la teoria de l’evolució biològica d’ençà que fou formulada per Charles R. Darwin en la cèlebre obra L’origen de les espècies, publicada l’any 1859.
A la biosfera hi ha milions d’espècies diferents d’éssers vius. N’han estat descrites un milió i mig, però es calcula que n’hi deu haver entre 5 i 30 milions. De la biologia de la major part d’aquestes espècies en sabem ben poca cosa, però el problema més greu és que l’actuació humana n’està incrementant considerablement la velocitat d’extinció.
El modern concepte de biodiversitat,popularitzat a partir de la dècada de 1980 pel naturalista nord-americà Edward O. Wilson, fa referència a la diversitat de la vida i, més concretament, a la variabilitat dels organismes vius (plantes, animals, microorganismes) i dels complexos ecològics dels quals formen part.
Encara que el mot biodiversitat s’utilitzi sovint per referir-se a les espècies diferents que viuen en un indret determinat, l’element definidor del concepte de biodiversitat és el de la riquesa genètica. Cal preservar aquesta riquesa perquè és el fruit dels milers de milions d’anys d’evolució biològica sobre el planeta i perquè constitueix la reserva natural que ens permet obtenir els recursos naturals necessaris per fer front als nous reptes.
La biodiversitat és patrimoni comú de la humanitat. En els seus aspectes econòmics la biodiversitat té un valor de consum directe, un valor recreatiu i un valor productiu, però, com que no és inesgotable, cal atribuir-li també un valor d’existència i un valor ecològic
Actualment, tota la biodiversitat existent es classifica en cinc regnes. Aquesta divisió remarca la diferència entre els procariotes (regne de les moneres) i els eucariotes (animals, plantes, fongs i protoctists). Les moneres es consideren els avantpassats de tots els éssers vius.
Tradicionalment, els éssers vius eren classificats en plantes i animals. Aquesta concepció es va convertir en insuficient per diverses causes. Per exemple, la microscòpia va fer repensar la classificació tradicional, ja que a partir del segle XVII es va fer innegable que, fora de l’abast de les nostres mirades, existien molts éssers vius gairebé inclassificables amb aquell esquema. En el segle XIX es van fer més clares les diferències que separen els bacteris o els fongs de la resta d’organismes, i van començar a sorgir propostes de nous regnes per englobar-los. La teoria evolucionista i els descobriments dels paleontòlegs van fer pensar que les classificacions correctes s’havien de basar en les relacions evolutives de les espècies, és a dir, en les filogènies de la vida a la Terra.
Ernst Haeckel, biòleg evolucionista alemany, va proposar l’existència d’un tercer regne, el dels protists o organismes més primitius, que va reconèixer com els antecessors dels altres dos regnes. El mateix Haeckel va establir, dins del regne dels protists, el grup de les moneres per singularitzar els organismes sense nucli cel·lular: els bacteris. L’any 1937, Edouard Chatton va proposar la utilització del terme procariota per identificar cianofícies i bacteris posseïdors d’una estructura cel·lular simple (sense nucli, ni mitocondris, ni cloroplastos, etc.) i el terme eucariota, que engloba la resta de formes vivents, l’estructura cel·lular de les quals, molt més complexa i evolucionada, inclou la presència de nucli i orgànuls típics, com ara mitocondris o cloroplastos.
Aquesta divisió entre procariotes i eucariotes es va generalitzar, i actualment ha estat acceptada com la més gran discontinuïtat evolutiva que pot observar-se en el món actual. La classificació actual divideix la natura en cinc regnes. Va ser proposada l’any 1959 pel biòleg nord-americà Robert Whittaker i ha estat molt difosa, entre altres, per Lynn Margulis. Els cinc regnes són els següents: les moneres, els protoctists, els fongs, les plantes i els animals.
Regne de les moneres
Comprèn els bacteris i les anomenades algues cianofícies o cianobacteris, que en realitat són un tipus de bacteris. Representen els organismes més antics (amb restes fòssils de més de 3800 milions d’anys d’antiguitat). Les seves cèl·lules són procariotes, és a dir, sense nucli diferenciat i amb una estructura més senzilla que la de les cèl·lules eucariotes, respecte a les quals també són més petites. Hi ha moneres autòtrofes i heteròtrofes, i els seus règims alimentaris són d’allò més variats. Els arqueobacteris, un peculiar grup de bacteris, sembla que són més antics que la resta i podrien constituir un regne a part. Les moneres han senyorejat la Terra durant la major part de la història del planeta. En l’actualitat, comparteixen els hàbitats amb els organismes eucariotes, i tot i que continuen predominant arreu, ho fan especialment en els hàbitats més extrems, on els eucariotes no poden viure.
Ernst Haeckel (1834-1919) proposà la creació d’un tercer regne per separar les plantes i els animals dels organismes més primitius, que anomenà protists
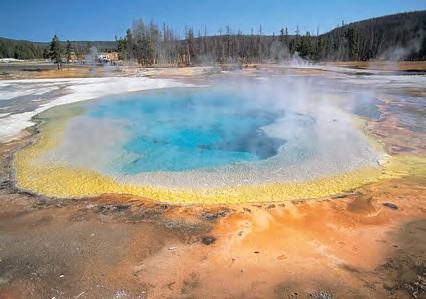
L’ambient d’aquest guèiser, que es troba al Parc Nacional de Yellowstone, als Estats Units, constitueix un ecosistema ric en moneres, algunes de les quals donen aquestes coloracions.
La biòloga Lynn Margulis ha defensat i difós la divisió dels organismes en cinc regnes.
Regne dels protoctists
S’hi inclouen els protozous i les algues. Les cèl·lules són de tipus eucariota, com ara les dels fongs, les plantes i els animals. Antigament, s’anomenaven protozous els organismes unicel·lulars proveïts de cilis o flagels, i també les amebes i organismes similars, i s’estudiaven com un grup més d’animals. Són protoctists, per tant, els paramecis, les vorticel·les, etc. L’altre gran grup de protoctists són les algues, tant les unicel·lulars com les multicel·lulars. Aquestes últimes, però, no tenen autèntics teixits, sinó més aviat masses de cèl·lules que interaccionen poc entre si, encara que alguns feòfits (algues brunes), com ara els sargassos, tenen un desenvolupament i una complexitat més grans. Mentre que la major part dels protozous són heteròtrofs, les algues són autòtrofes (encara que hi ha moltes formes secundàriament heteròtrofes). En realitat, el regne dels protoctists es defineix per exclusió. El concepte de protoctist va ser proposat l’any 1956 i engloba aquells eucariotes que no es desenvolupen ni a partir de blàstules (no són, per tant, animals), ni a partir d’un embrió (tampoc no són plantes), ni a partir d’espores. Els seus hàbitats són força variats.
Regne dels fongs
Les aproximadament 70000 espècies de fongs conegudes actualment es caracteritzen pels seus filaments de cèl·lules o hifes que formen un miceli. En una fase o altra es reprodueixen per espores. Són organismes de nutrició heteròtrofa. De moment, la seva història evolutiva no és gaire coneguda (els fongs fòssils més antics són del devonià, de fa uns 400 milions d’anys, i estan íntimament relacionats amb restes vegetals igualment fossilitzades). Habitualment, són terrestres.
Regne de les plantes
Les plantes són organismes pluricel·lulars autòtrofs. Les seves cèl·lules presenten una paret cel·lular de cel·lulosa i formen teixits i òrgans diversos, amb un important grau d’especialització. Comprenen, pel cap baix, unes 500000 espècies. S’originaren a partir dels cloròfits o algues verdes, i es divideixen en briòfits o plantes no vasculars (molses i afins) i traqueòfits, plantes vasculars amb teixits conductors (xilema i floema).
Regne dels animals
Els animals són organismes pluricel·lulars heteròtrofs. Les seves cèl·lules estan també especialitzades en teixits diversos. Tenen òrgans i sistemes d’òrgans. Quan es reprodueixen sexualment (per anisogàmia), es desenvolupen a partir d’una blàstula, la qual origina, per divisió del zigot, un embrió, que, en créixer, forma l’individu adult diploide. Les restes animals fòssils més antigues tenen al voltant d’uns 700 milions d’anys. Tots els fílums d’animals actuals (i molts altres d’extingits) estaven ja representats en començar els temps paleozoics.
Els virus no s’inclouen en cap dels cinc regnes anteriors. La seva estructura no cel·lular no es correspon amb la de cap dels seus representants. Es pensa que es podrien haver originat per fragments d’àcids nucleics escapats de cèl·lules. Molt probablement estan més emparentats amb les cèl·lules de les quals provenen que entre ells.
El resultat de tants milions d’anys d’evolució és una biosfera constituïda per éssers vius adaptats al medi on viuen. L’adaptació és l’adequació dels organismes a l’ambient on viuen. Aquesta adequació, fruit de la selecció natural i, per tant, qüestió de supervivència, afecta tant les seves característiques anatòmiques (de forma), com les fisiològiques (de funcionament) i les etològiques (de conducta). Si el talp està adaptat a la vida subterrània, amb les extremitats anteriors excavadores i amb els òrgans dels sentits modificats, i el peix ho està a la vida aquàtica, amb la forma hidrodinàmica, la bufeta natatòria, la línia lateral que li permet captar la composició química de l’aigua, etc., és perquè aquesta manera de ser els ha permès de sobreviure i colonitzar aquells hàbitats i deixar-hi descendents.
L’adaptació no és, però, gens estàtica, sinó que es dóna contínuament. Si l’ambient canvia, cal adaptar-s’hi de nou. Qui ho aconsegueix prospera i continua deixant-hi descendents; qui no ho aconsegueix estarà abocat al desastre encara que en el passat la seva ascendència hagi estat abundant. Si apareix un ambient nou (una illa emergida després d’una erupció volcànica, un prat allà on el foc ha cremat el bosc, etc.), molts pugnen per instal·lar-s’hi. Només aquells que poden adaptar-se o que ja estan adaptats a aquelles determinades condicions ambientals ho aconsegueixen. Per exemple, per què als marges d’un estany en un terreny a poca altitud hi ha tanta exuberància de canyís i de vegetació emergida i no n’hi ha, en canvi, a les ribes d’un llac dels Pirineus? Perquè el llac està gelat durant tot l’hivern i el glaç dificulta la presència de plantes d’aquell tipus a les vores.
Tampoc no s’ha de caure en l’exageració de pensar que tot és adaptació. Molts caràcters són, de fet, indiferents. Ser cec no té res de bo ni per al talp, però pot ser que per a aquest animal no representi cap problema ser-ho i, en canvi, en l’ambient en el qual viu li resultaria ben difícil de mantenir els ulls nets.
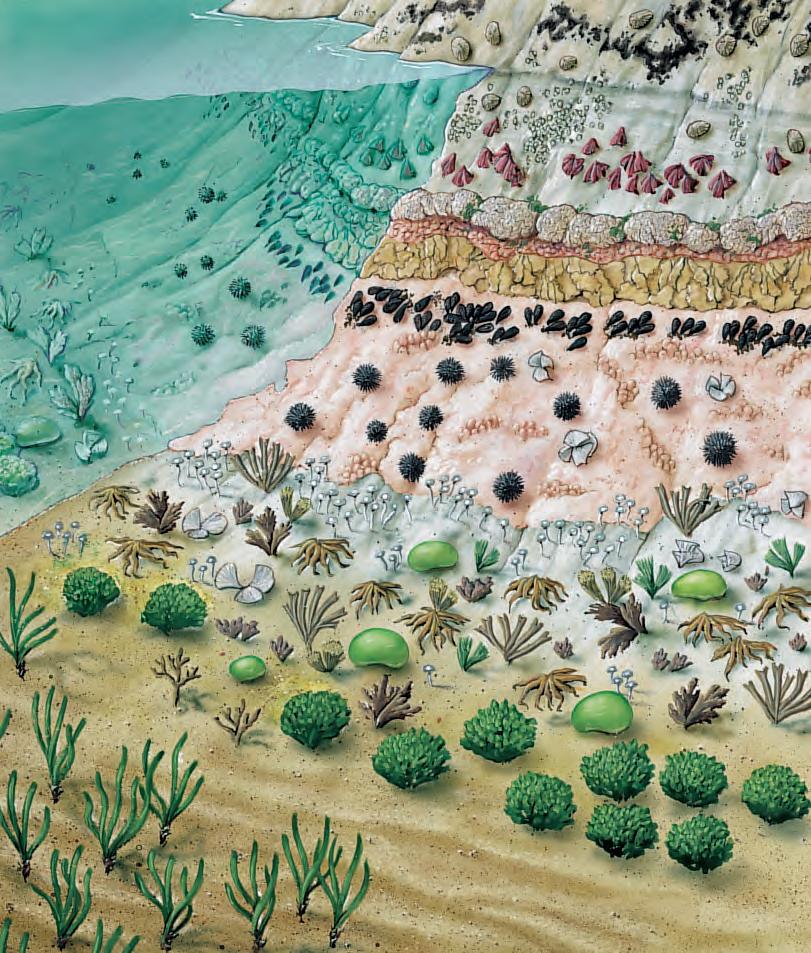
L’eficiència en l’aprofitament de les diferents longituds d’ona de la llum explica la zonació horitzontal de les algues del fons marí i, de retruc, la dels organismes que en depenen.
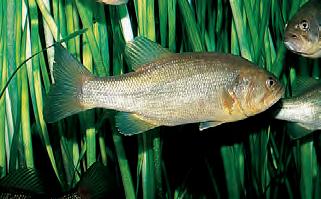
Black-bass o perca americana. Les espècies biològiques estan sotmeses a contínues pressions ambientals. A vegades se’n surten i expandeixen la seva àrea de distribució. Si no és així, entren en regressió i poden arribar a extingir-se. A l’expansió d’unes espècies en detriment d’unes altres hi contribueix l’ésser humà, quan, com en el cas del black-bass, introdueix espècies noves en àrees en les quals no vivien.
L’ecosistema és una unitat funcional de la natura. S’hi poden distingir dues parts: la biocenosi i el biòtop. La primera la formen tots els organismes (animals, plantes i microorganismes) que habiten un lloc determinat, mentre que el segon és el conjunt de factors físics i químics que integren l’ambient en què viuen els organismes.
3.1. Els ecosistemes
En realitat, els éssers vius s’adapten també els uns als altres perquè no viuen aïllats. Els animals, les plantes i els microorganismes de cada espècie biològica constitueixen poblacions naturals, estan relacionats entre si i amb el medi i constitueixen una unitat que s’anomena ecosistema.
L’ecosistema és una unitat funcional constituïda per tots els éssers vius (biocenosi o comunitat) que habiten un lloc determinat, com també pel conjunt total de factors físics i químics (factors abiòtics) que afecten la vida animal o vegetal d’aquest lloc determinat (biòtop). És a dir, un ecosistema és, doncs, el biòtop més la biocenosi que l’habita, els quals s’interrelacionen mútuament.
El terme ecosistema, proposat pel naturalista Arthur G. Tansley l’any 1935, fa referència a un concepte ampli i subratlla, des de la perspectiva de l’ecologia, les forçoses relacions causals i d’interdependència a què estan sotmesos els éssers vius en el medi natural.
Són exemples d’ecosistemes un llac, una clapa de bosc o la selva tropical, però també, si bé més reduïts, la soca d’un arbre o un bassal. Tota la biosfera es pot considerar un ecosistema únic, però a efectes d’estudi és clar que convé dividir-la en unitats naturals. De fet, però, un ecosistema és més que una unitat en l’espai o una unitat de funcionament; un ecosistema és, amb paraules de Tansley, «una creació mental que ens permet imaginar fronteres entre aquest ecosistema i la resta de l’univers».
De les relacions mútues i de l’estudi dels éssers vius d’un ecosistema ens n’ocuparem en les unitats didàctiques següents, mentre que ara estudiarem els factors abiòtics. Els principals factors ambientals que cal considerar en un ecosistema són la llum, la temperatura i la humitat o disponibilitat d’aigua. En determinats ecosistemes són també factors molt importants la salinitat, la pressió i la naturalesa del sòl.
La llum té una influència decisiva en la distribució de les plantes, ja que els és necessària per fer la fotosíntesi. Els vegetals, doncs, només viuen als indrets il·luminats. Per això, en el medi aquàtic tan sols hi ha vegetació en l’anomenada zona fòtica, que és la zona en la qual arriba la llum. Segons que l’aigua sigui tèrbola o transparent, aquesta zona assoleix una profunditat mitjana de 80 o 100 metres.
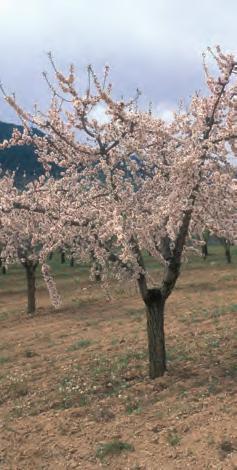
En el medi terrestre algunes plantes estan ben adaptades a viure a ple sol, en zones ben il·luminades. És el cas, per exemple, de la farigola i del romaní. D’altres, com ara la viola i la maduixera silvestres, només prosperen en ambients ombrívols, sota la coberta protectora d’altres vegetals. Si aquesta coberta desapareix, les condicions de vida esdevenen difícils i poden arribar a desaparèixer.
La llum té una influència decisiva en molts aspectes de la vida de les plantes i dels animals. Aquesta influència es manifesta en molts casos a través del denominat fotoperíode. S’anomena així el lapse diari d’hores de llum (en contraposició amb les de fosca). Tret de l’equador, aquesta durada relativa del dia i de la nit varia al llarg de l’any, variació que és percebuda, per mitjà de sistemes moleculars sensibles com ara els fitocroms, pels organismes, els quals hi adapten el seu cicle biològic.
La brotada, la floració, la caiguda de la fulla, la germinació i altres aspectes de la vida de les plantes estan determinats pel fotoperíode. Els animals regulen l’activitat diària segons la llum: n’hi ha que són crepusculars o nocturns; d’altres, en canvi, plenament diürns. La variació de la lluminositat diària o fotoperíode contribueix a la regulació d’aspectes tan importants de la seva vida com és ara la migració, la reproducció, la muda, etc.
S’anomena fenologia la branca de l’ecologia que estudia la relació entre la llum, i altres factors climàtics, i la manifestació estacional en plantes i animals de caràcters d’adaptació periòdica.
Conducta gregària hivernal
Migració cap al sud
Inquietud nocturna
Conducta
Els vegetals que regulen la floració per la variació del fotoperíode s’adapten millor que els que ho fan per la temperatura, ja que aquesta té variacions irregulars.
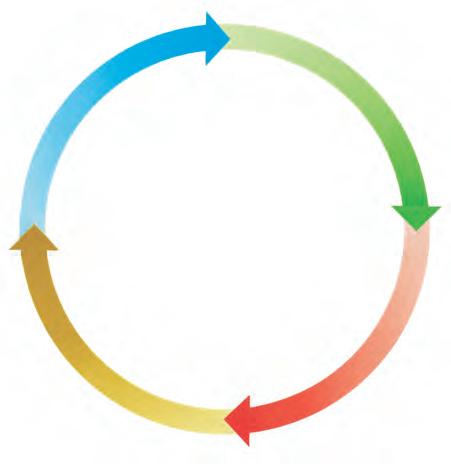
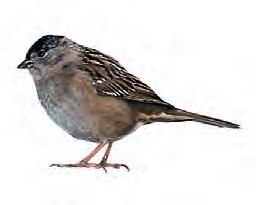
Cicle fenològic d’un moixó, el qual mostra la relació entre els factors climàtics i les variacions estacionals de la fisiologia i la conducta d’aquest animal.
Fisiologia
Acumulació de greix
Augment del consum d’aliment
Augment del consum d’aliment
Inquietud nocturna
Muda
Acumulació de greix
Regressió de les gònades
Desenvolupament de les gònades
Cura de la prole
Migració cap al nord
Elecció del territori
Cant, formació de parelles i aparellament
La major part de les plantes responen a un fotoperíode exacte. Les plantes de dia llarg floreixen quan els dies s’allarguen, a la primavera, en concret quan les hores de llum superen els valors indicats en la il·lustració. En canvi, les plantes de dia curt responen a l’escurçament del dia de finals d’estiu i tardor; la lleterola, per exemple, floreix quan el dia té menys de 12 hores de llum. Però com que la durada del dia depèn de la latitud, una planta que floreix quan el dia s’escurça fins a només 11 hores ho farà a l’octubre si es troba a 50°de latitud. Si la mateixa planta es trobés a 20°de latitud, la seva floració es retardaria fins al desembre.
Pel que fa a les condicions físiques que influeixen sobre la vida dels organismes, el mar es pot dividir en una zona nerítica i una zona oceànica
La zona nerítica, d’aigües relativament poc profundes, està situada damunt de la plataforma continental. Ben il·luminada, es beneficia dels corrents marins i del moviment de les ones que, sovint, en topar amb el fons remouen les aigües i fan pujar cap a la superfície, allà on hi ha el fitoplàncton, els nutrients. En conseqüència, és una zona sovint rica en vida.
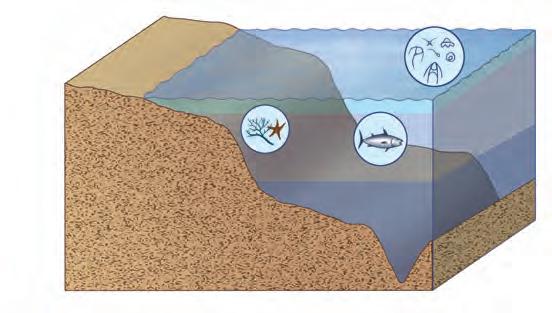
La zona oceànica és la que està situada més enllà de la plataforma, la zona de mar obert. Es pot dividir, verticalment, en tres subzones: fòtica, batial i abissal
La zona fòtica és la zona superficial il·luminada (entre 50 i 200 m de profunditat). És la zona productora. Per sota, tots els organismes depenen, d’una manera o altra, del que cau des d’aquest nivell. Allà on acaba la zona fòtica, comença la zona batial, fins més enllà de la base del talús continental. A profunditats superiors als 3000 m comença la zona abissal, que, tanmateix, no existeix al Mediterrani occidental.
La temperatura influeix d’una manera molt important en la vida dels organismes. En general, la vida activa només és possible en la franja compresa entre pocs graus sota zero i 50 °C. Si les temperatures superen aquests límits, es pot produir la mort per congelació o per desnaturalització de les proteïnes.
En el medi terrestre l’amplitud tèrmica que han de suportar els organismes és gran. Les roques i l’aire s’escalfen i es refreden amb facilitat; en canvi, en el medi aquàtic les oscil·lacions són molt més estretes, perquè la capacitat calorífica de l’aigua és elevada. El fet que l’aigua tingui una densitat màxima a 4 °C fa que mars i estanys profunds es gelin només en superfície, ja que al fons s’acumula aigua líquida a uns 4 °C. Així, ni que sigui a temperatures ambientals molt baixes, la vida continua sota la superfície gelada.
Moltes plantes, per exemple els pollancres, els roures o els plàtans (arbres caducifolis), resisteixen els canvis de temperatura reduint o interrompent l’activitat, la qual cosa es tradueix en la caiguda de les fulles quan arriba el mal temps, normalment a l’hivern. Però en el clima mediterrani molt sovint la pitjor situació es dóna a l’estiu, ja que l’elevada temperatura i la manca d’aigua comporten aleshores un greu perill de dessecació. Per aquest motiu, algunes plantes, com ara les estepes o la mula o lleterassa, perden les fulles a l’estiu.
En èpoques desfavorables les parts aèries d’altres plantes, davant d’una combinació de factors adversos, moren. Sota terra, però, hi queda un bulb o un rizoma viu que brotarà quan les condicions ambientals millorin.
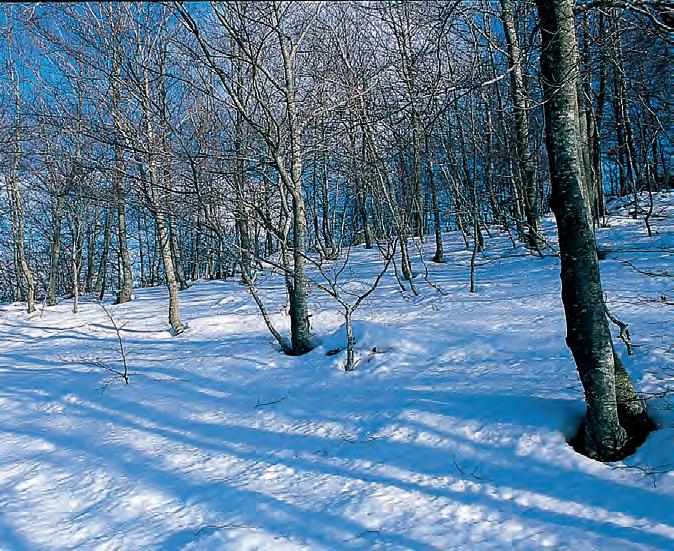
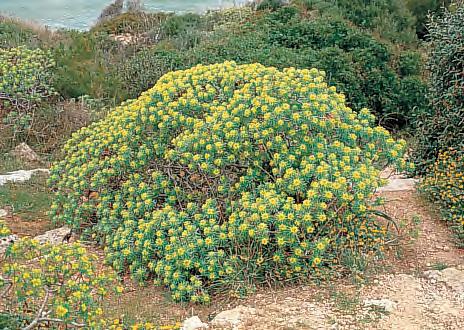
Algunes plantes resisteixen els canvis de temperatura reduint l’activitat. La lleterassa (a la il·lustració de dalt) perd les fulles a l’estiu per adaptar-se a la sequera; en canvi el faig (a la il·lustració de l’esquerra) les perd quan arriba la tardor per adaptar-se a les baixes temperatures de l’hivern.
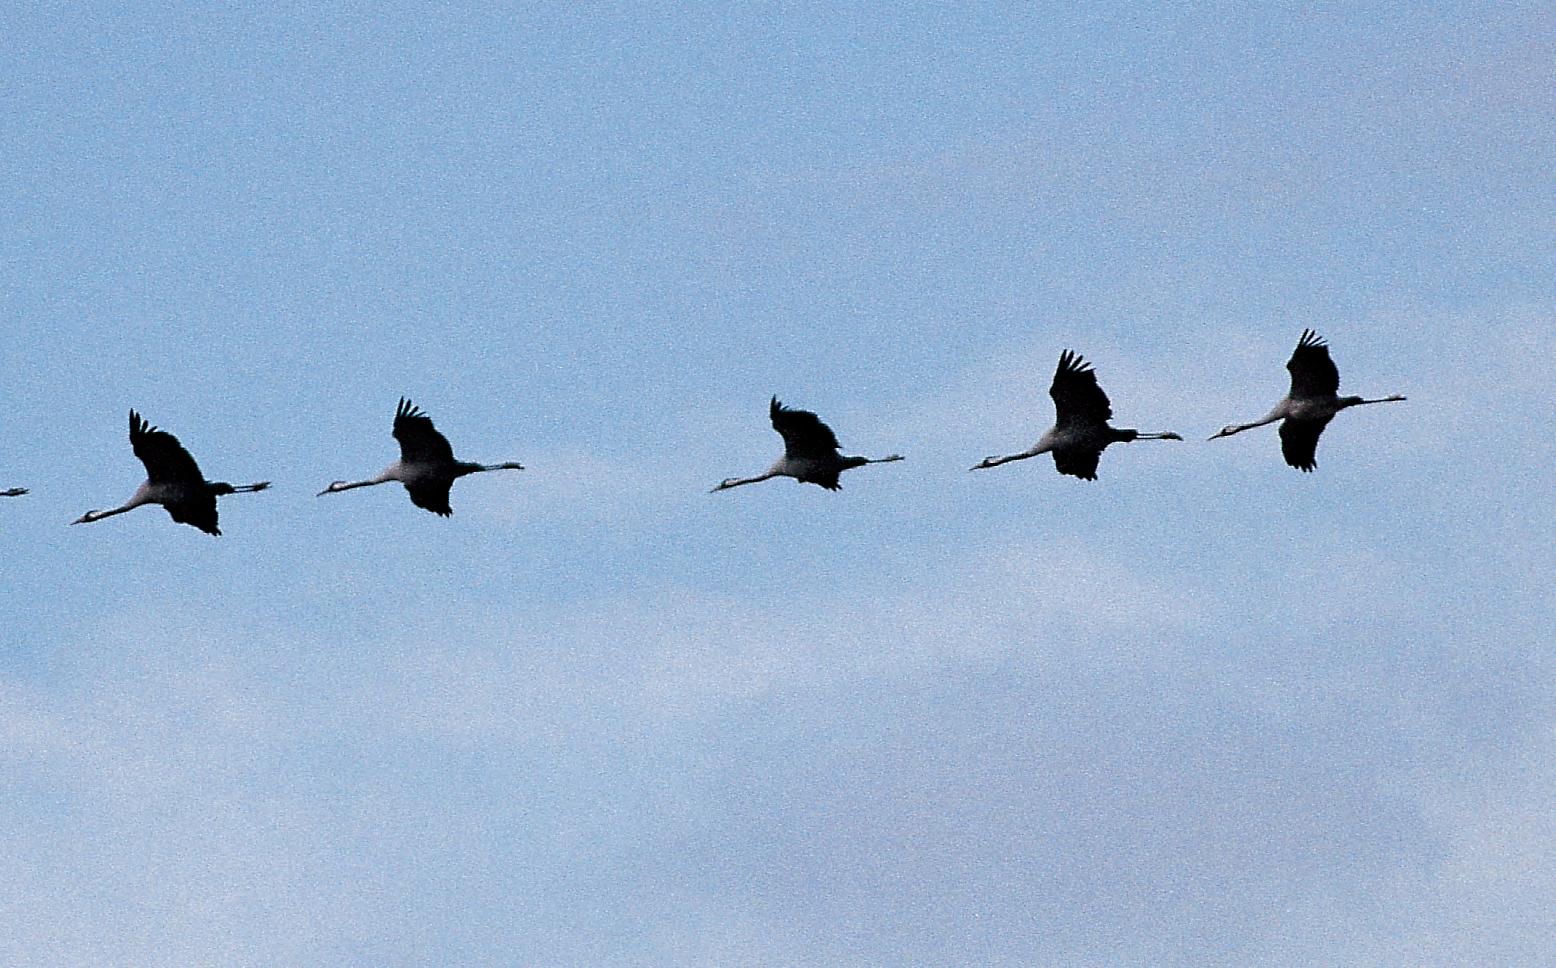
Alguns ocells, com ara les grues de la fotografia, quan arriba la tardor migren a zones amb condicions climàtiques més favorables. A la primavera, repeteixen el viatge en sentit invers.
Molts disposen d’un pelatge d’hivern, més gruixut i aïllant, sota el qual acumulen greix. A més, es busquen un cau, s’amaguen sota terra o busquen l’ombra dels arbres, per exemple.
Els animals es distingeixen entre els que tenen la capacitat de regular la temperatura del seu cos (homeoterms), com ara les aus i els mamífers, i aquells en què la temperatura corporal depèn de la temperatura ambient (poiquiloterms), per exemple els rèptils. Aquests últims, doncs, «necessiten prendre el sol» per escalfar-se i ser actius, mentre que quan fa fred, inevitablement, estan inactius.
És ben cert, encara que no sempre prou elegant, que una bona manera de defensar-se és fugir. De fet, molts animals presenten estratègies d’aquest tipus: «desaparèixer» quan arriba el mal temps. Aquesta desaparició pot consistir a disminuir fins a límits molt baixos, dins la protecció d’un bon amagatall, el metabolisme o l’activitat biològica, en una vida latent (letargia). Això passa quan arriba l’estació desfavorable, que tant pot ser l’hivern –hibernació– com l’estiu; aquest és el cas de la diapausa estival de molts insectes mediterranis, que estan en fase de repòs (pupa o crisàlide) fins que no arriben les pluges de tardor.
Ara bé, la migració és potser la manera més expeditiva, i literalment més exacta, d’evitar les èpoques desfavorables fugint. La migració consisteix en el desplaçament, a la tardor, sovint en grups nombrosos, des d’una àrea de cria fins a una zona més benigna, d’hivernada (a vegades a milers de quilòmetres de distància). En començar la primavera es repeteix el viatge en sentit invers.
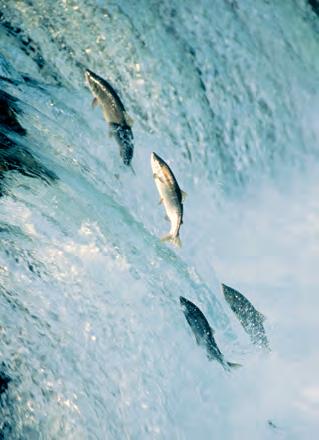
Anguiles i salmons: els grans migradors
Després d’anys i anys d’interpretacions inversemblants, l’any 1925 el naturalista danès Johannes Schmidt aclarí amb les seves recerques els principals trets del fantàstic cicle biològic de les anguiles. L’anguila és un peix catàdrom, és a dir, viu als rius i va a reproduir-se al mar. Un cop han arribat a la maduresa sexual, les anguiles que viuen en les aigües continentals d’Europa i del nord d’Àfrica es desplacen en grans grups cap a la zona central de l’Atlàntic. Aquí, a la regió del mar dels Sargassos i a una fondària superior als 500 metres, efectuen, a finals d’hivern i després de mig any de viatge, la posta (prop de 10000000 d’ous per femella). Després d’aquest viatge extenuant, els adults moren. Dels ous fecundats en neixen uns petits alevins que es transformen en unes estranyes criatures amb aspecte com de fulla –aplatades i transparents– d’uns quants centímetres de longitud i tan diferents dels adults que van ser anomenats leptocèfals ja que es creia que eren una espècie completament diferent.
Un cop ja transformades en angules –amb ulls i cos cilíndric– aquelles criatures emprenen un viatge extraordinari que les conduirà –a través d’un itinerari de tornada invers al dels seus pares i afavorit pel corrent del golf– cap als rius europeus i els del nord d’Àfrica, on arribaran uns tres anys després d’haver nascut. Prop ja de la costa, les que romanen prop de les desembocadures esdevenen mascles, mentre que les que remunten riu amunt (a finals de la tardor, i sempre de nit) seran femelles. Quatre o cinc anys després, potser fins i tot deu, aquestes femelles baixen riu avall i en la seva desembocadura es reuneixen amb els mascles per dirigir-se cap al mar dels Sargassos.
Per la seva banda –i al contrari de les anguiles– els salmons són peixos anàdroms; és a dir, viuen al mar i van a reproduir-se a la capçalera dels rius. El salmó atlàntic viu a les aigües fredes de la plataforma continental de l’Atlàntic Nord (per damunt dels 30°de latitud N). Quan tenen quatre o cinc anys de vida, els adults es dirigeixen cap a les desembocadures dels rius europeus i nord-americans, on solen arribar just al final de l’estiu, quan s’inicia la seva maduració sexual. En aquest desplaçament de milers de quilòmetres els salmons s’orienten tal vegada per la posició dels astres, però un cop s’apropen a la costa són els estímuls olfactius els que els permeten localitzar el riu on van néixer. Un cop han ajustat la concentració salina dels seus teixits a les condicions osmòtiques del nou medi, mascles i femelles remunten riu amunt. Aleshores, es nodreixen de les seves reserves i neden i salten activament per salvar tota mena d’obstacles (però no, és clar, les preses dels embassaments, que requereixen la construcció d’escales salmoneres que els puguin facilitar el pas). Finalment, arriben als fresers del curs alt del riu. Allí la femella, al començament de l’hivern, efectua la posta apressada pels mascles, que ràpidament la cobreixen amb la seva lletada. Després, la gran majoria dels adults moren esgotats (les seves restes, però, nodriran de vida les aigües). Els alevins que neixen dels ous fecundats es transformen en salmons en el mateix riu, on romanen potser més de dos anys fins que inicien el viatge cap a l’Atlàntic Nord.
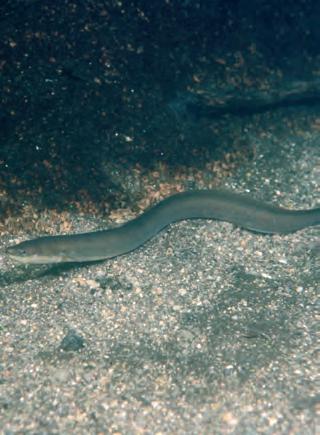
Les anguiles viuen als rius, però es reprodueixen al mar. Un cop adultes, es desplacen cap al mar dels Sargassos, on crien.
Els salmons viuen al mar i van a reproduir-se a la capçalera del riu on van néixer.
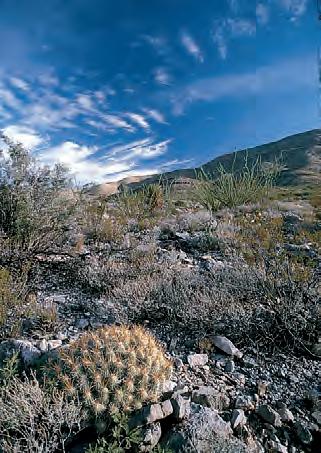
En el medi terrestre, a vegades la disponibilitat d’aigua és molt escassa. Les plantes crasses poden sobreviure als deserts gràcies a l’aigua que acumulen a les tiges, sovint esfèriques.
En el medi terrestre l’aigua pot arribar a ser molt escassa i aleshores és un factor limitador per a l’existència dels éssers vius. Per això, els éssers vius de les zones àrides tenen característiques que els permeten sobreviure amb la poca aigua que tenen.
Les plantes crasses o suculentes, com ara els cactus, acumulen l’aigua a les tiges, sovint esfèriques, i, freqüentment, tenen les fulles reduïdes a espines. D’aquesta manera limiten al mínim la superfície d’evaporació per on s’escapa l’aigua (l’esfera té, proporcionalment al seu volum i en comparació d’altres formes geomètriques, una superfície mínima). A més, els estomes de les tiges d’aquestes plantes s’obren per permetre l’intercanvi de gasos només a la nit, quan fa menys calor, i queden tancats durant el dia.
No tan extrema, però igualment útil per conservar l’aigua, és l’adaptació dels vegetals xeròfits, com ara l’alzina, l’olivera, el romaní i moltes altres plantes mediterrànies comunes. Els xeròfits tenen les fulles petites, de coberta dura, més aviat seca i amb pocs estomes. Sovint el revers de la fulla, que és on més abunden els estomes, està recobert d’un borrissol de pèls que entorpeix la sortida de vapor d’aigua.
La fecundació de les granotes no s’esdevé per còpula, sinó que és externa. La fecundació interna d’altres animals, en canvi, permet que s’independitzin de l’aigua i és, per tant, una adaptació al medi terrestre.
En canvi, els vegetals que viuen en ambients de molta humitat, com ara els de l’interior de les selves plujoses, tenen les fulles grosses, tendres i primes, i sovint aquestes fulles acaben en una punta per on degota l’aigua. Moltes plantes considerades d’interior, de les que es venen a les floristeries per tenir a casa, tenen aquest origen, tal com testimonien les seves formes.
Molts líquens i algunes molses suporten condicions de sequera extrema i en tenen prou amb la humitat atmosfèrica que capten. Ara bé, la seva activitat queda limitada als moments en què l’aire atmosfèric presenta prou humitat.
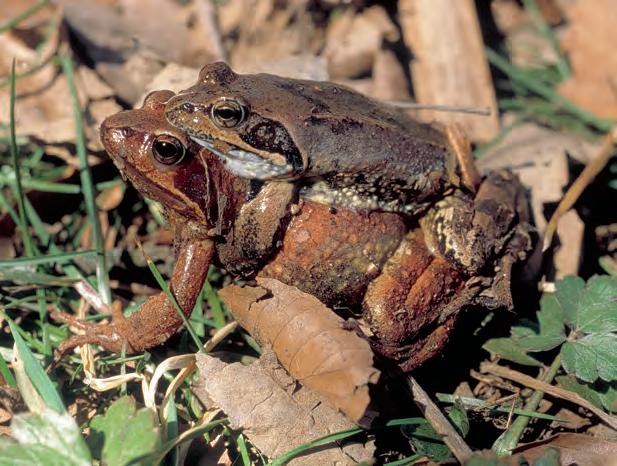
Pel que fa als animals, molts presenten un tegument més o menys gruixut per evitar pèrdues excessives d’aigua, sovint protegit per cutícules o exosquelets de quitina (com en els insectes) o amb formacions epidèrmiques diverses: pèls, plomes, escates, etc. La fecundació interna de molts animals i el tipus d’ous dels rèptils i de les aus són estratègies degudes en bona part a l’adaptació a medis terrestres que són pobres en aigua. Per la seva banda, els animals hipogeus, que viuen sota terra, hi troben un ambient molt més uniforme, amb temperatures no tan extremes i molta menys sequera que a la superfície.
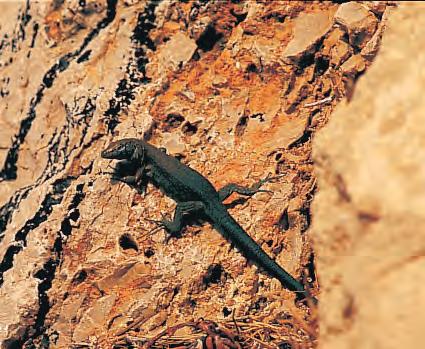
1.1. A les illes Balears (sobretot als illots costaners) s’hi han trobat sargantanes diferents de les de la península Ibèrica. Totes les sargantanes de les Balears deriven de la sargantana peninsular Podarcis muralis. Actualment s’accepta que a les illes Balears hi ha dues espècies diferenciades: l’espècie Podarcis lilfordi, a la zona de Mallorca i Menorca, i l’espècie Podarcis pityusensis, a la d’Eivissa i Formentera. Tenint en compte aquest fet, respon a les preguntes següents:
a) Fa uns sis milions d’anys, durant el plistocè, el territori corresponent a les Balears estava unit a la península Ibèrica. Quina mena de sargantanes hi havia? Raona la resposta.
b) En separar-se aquell territori, es van formar les actuals illes Balears i els illots abundants que les circumden, on van quedar molts grups de sargantanes sense possibilitat d’encreuar-se entre ells. Quin efecte ha tingut aquest fet en l’evolució d’aquests grups?
c) Moltes d’aquestes sargantanes presenten adaptacions a diferents hàbitats. Per quin mecanisme han aparegut aquestes adaptacions?
d) Exposa una hipòtesi que expliqui per què determinades poblacions de sargantanes balears són negres.
1.2. Les fotografies de sota mostren l’aspecte estiuenc i hivernal d’una fageda. Fes una relació de les adaptacions que les plantes i els animals que hi viuen han de presentar a les particulars condicions ambientals (de temperatura, llum, etc.) i als seus canvis. Posa’n exemples.
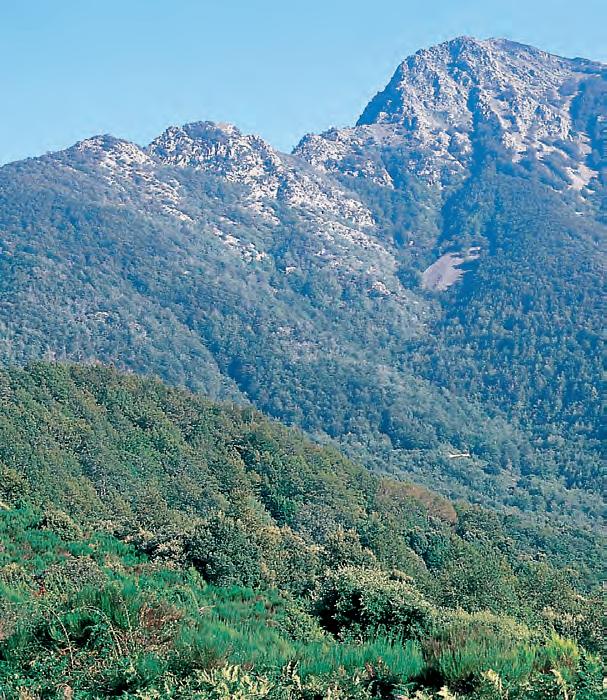
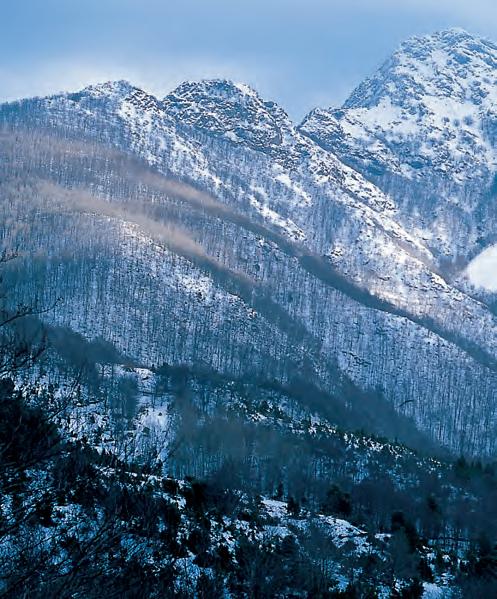
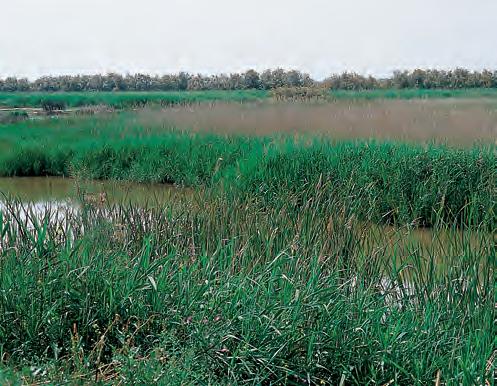
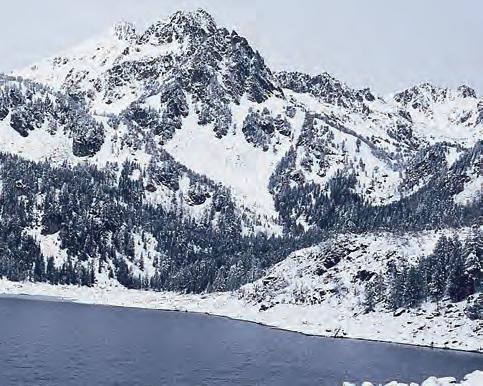
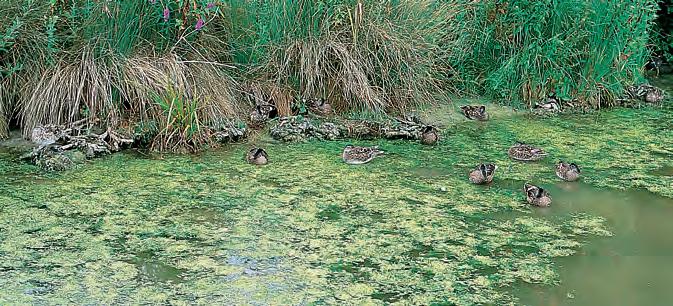
1.3. Explica per què la vegetació de la llacuna de la fotografia de l’esquerra presenta un aspecte tan diferent de la vegetació del llac que hi ha a la fotografia de la dreta. Comenta, a més, les diferents condicions ambientals que afecten els animals que hi viuen. Posa’n exemples.
1.4. Amb relació als ecosistemes marins, respon a les preguntes següents:
a) Quins són els factors abiòtics més decisius pel que fa a la distribució dels organismes?
b) En quina zona de la mar són més abundants els herbívors?
1.5. Fes un treball de recerca bibliogràfica sobre el fotoperíode de les plantes. Estructura’l de la manera següent:
– Introducció, concepte i descripció del fenomen.
– Primera part: la fenologia (inclou-hi un petit calendari fenològic relatiu a algunes plantes cultivades comunes).
– Segona part: el fotoperíode i els animals (canvis de conducta i d’aspecte relacionats amb la llum).
– Tercera part: els mecanismes interns (fitocrom i rellotges biològics…).
1.6. Explica i argumenta si els aspectes següents tenen o no caràcter adaptatiu:
a) La morfologia de les plantes crasses o suculentes.
b) La morfologia de la fulla de l’alzina.
c) El fet que els ous dels ocells estiguin recoberts d’una closca.
d) La caiguda de les fulles d’alguns arbres en arribar l’hivern.
e) El fet que algunes plantes tinguin bulb.
f) Les migracions.
g) La pèrdua de les fulles a l’estiu, en el cas de la lleterassa.
h) L’existència de la bufeta natatòria en els peixos.
1.7. El gràfic número 1 indica la variació de la lluminositat al llarg de l’any a l’interior d’un alzinar i a l’interior d’un bosc de fulla caduca. Digues:
a) Per què a l’interior de l’alzinar la lluminositat és gairebé constant tot l’any?
b) Per què en l’altre cas disminueix tant la lluminositat durant la primavera i l’estiu? Posa un exemple de bosc de fulla caduca.
1.8. El gràfic número 2 indica la variació de la temperatura un dia d’estiu a l’interior i l’exterior d’un alzinar. Comenta’n les diferències i explica les conseqüències d’aquest fet sobre la vida dels animals i les plantes.
1.9. En les proximitats d’un determinat bosc mediterrani, els ocells més abundants a la primavera són el gafarró, el rossinyol i el tallarol capnegre, i en canvi, a l’hivern, els més abundants són el pardal de bardissa, el pit-roig, el gafarró i el tallarol capnegre. Digues quins d’aquests ocells són sedentaris i quins són migradors.
1.10. Què fan els animals per superar el fred?
1.11. Mitjançant una trampa de llum cap a la qual se senten atretes, hem mesurat el nombre de papallones nocturnes al llarg d’un any en un punt de la serra de Collserola, proper a la ciutat de Barcelona. Els resultats són els que et mostra el gràfic número 3.
a)Explica aquestes oscil·lacions, és a dir, l’abundància a la primavera, la davallada a l’estiu, la pujada un altre cop a la tardor…
b)On són les papallones a l’hivern?
1.12. Explica els trets característics (morfològics, metabòlics, reproductors i d’hàbitat) de cadascun dels cinc regnes en què es classifiquen els éssers vius.
La biogeografia permet dividir la superfície terrestre en una sèrie de zones o regnes biogeogràfics, caracteritzats per una fauna i una flora pròpies. Aquests regnes es divideixen en subregnes i en regions. Els regnes biogeogràfics terrestres són els següents: holàrtic (paleàrtic + neàrtic), etiòpic, neotropical, oriental i australià.
El clima i la topografia expliquen bastant bé la distribució dels animals i de les plantes. Cada espècie té una àrea de distribució (o dispersió) que és el seu límit biogeogràfic o porció de terra o d’aigua en què és present. La biogeografia estudia les àrees de distribució dels éssers vius.
Gairebé mai, però, una espècie no és present arreu on podria viure. Per exemple, l’Àfrica central i el Brasil tenen condicions ambientals similars, però mentre que a la primera hi ha, posem per cas, lleons i elefants, al Brasil hi ha, en canvi, mones aranya i tapirs. Per què? El fet és que l’estudi de la biogeografia ha de tenir en compte l’evolució, és a dir, el passat, i en l’exemple concret que acabem d’esmentar de la diferència de fauna entre el Brasil i l’Àfrica cal tenir en compte la història de les faunes mesozoica i cenozoica i la barrera geogràfica que suposà l’expansió de l’oceà Atlàntic.
Els regnes biogeogràfics.
L’extensió de les àrees de dispersió és molt variable. L’extrem superior és el d’aquelles espècies l’àrea de distribució de les quals comprèn, de fet, tot el món. Aquestes espècies s’anomenen espècies cosmopolites. En són exemples, entre altres vegetals, el canyís i l’ortiga i, entre els animals, la mosca comuna, l’òliba o l’àguila pescadora. Precisament alguns d’aquests darrers exemples animals ens ajuden a comprendre
que el concepte d’àrea de distribució no guarda precisament relació amb l’abundància o densitat de les poblacions. Una espècie pot tenir una àrea de distribució ben extensa –fins i tot ser cosmopolita– i, en canvi, estar representada per només uns quants exemplars.
Les àrees de distribució no cosmopolites es poden classificar en contínues i disjuntes. Són contínues aquelles que, com per exemple la del porc espí, s’estenen a través d’una regió de forma continuada, sense salts ni discontinuïtats. En canvi, les àrees disjuntes són aquelles que són constituïdes per dues o més extensions separades per altres zones en les quals, malgrat constituir –si més no en ocasions– indrets adequats per a la presència de l’espècie, aquesta no hi habita. És el cas, per exemple, de l’àrea de distribució del goril·la, a l’Àfrica, integrada per dues àrees pròximes a la selva equatorial del golf de Guinea, entre la República del Congo, el Gabon, Guinea Equatorial i el Camerun, així com una tercera d’aïllada i a més de 1000 quilòmetres de les anteriors, situada a l’Àfrica central, concretament a la regió dels llacs i les muntanyes Virunga (que s’estenen pels territoris de la República Democràtica del Congo, Uganda i Ruanda).
Mentre que l’àrea d’una espècie cosmopolita és la d’una espècie biològica que ha expansionat fins al límit el seu territori (a vegades amb l’ajut humà, com en el cas de les mosques, les ortigues o les puces), una àrea disjunta il·lustra que l’espècie habitava, en un passat més o menys llunyà, les zones intermèdies que actualment separen els diversos fragments de l’àrea, en les quals, tanmateix, s’extingí, de manera que ha acabat per ocupar només les zones actuals. Les causes d’aquella extinció a les zones intermèdies poden ser tan diverses com les espècies en qüestió, si bé en la majoria dels casos tenen a veure amb la variació geogràfica del clima, de la vegetació o en canvis relatius als depredadors o a interaccions orgàniques que l’espècie en qüestió no ha pogut superar. En són exemples les àrees actuals del goril·la i del rinoceront blanc, a l’Àfrica, reduïdes –per la pressió humana– a fragments o petites parcel·les disperses. Tal com sabem pels testimonis dels exploradors del final del segle XIX i del començament del segle XX, en el passat l’hàbitat d’aquestes espècies ocupava una àrea molt més extensa i abastava, de fet, totes les terres intermèdies.
Àrea de distribució del porc espí Àrea de distribució del rinoceront blanc l’any 1820
Àrea actual de distribució del rinoceront blanc
Àrea de distribució del porc espí, el rinoceront blanc i el goril·la.
0 2000 km
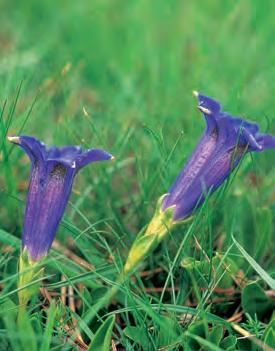
Les gencianes són espècies de muntanya.
Parnassiusapollo o papallona apol·lo.
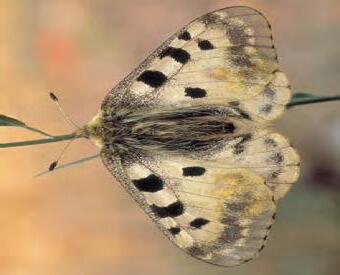
Àrea de distribució de la papallona apol·lo.
Quan s’estudia la naturalesa de les flors i la de la fauna de les altes muntanyes europees, s’observa que són força similars, fins a l’extrem que moltes plantes i animals que considerem propis dels Pirineus es troben també als Alps i als Apenins, a les muntanyes de les illes Britàniques o a Sierra Nevada. A més, aquests animals i aquestes plantes es troben també, amb molta freqüència, a la tundra del nord d’Europa. Es tracta d’un fenomen força comú i, en el cas dels vegetals, podem posar com a exemples les gencianes o la bonica llirga o marcòlic groc (Lilium pyrenaicum), una magnífica flor de lis dels Pirineus que també és present en altres muntanyes europees del continent i, fins i tot, a les de les illes Britàniques. En el domini de la zoologia també els exemples són múltiples, però potser el més conegut és el de l’esplèndida papallona apol·lo.
Totes aquestes àrees de distribució disseminades pels cims de les principals muntanyes europees i nord-americanes, com també per la zona circumpolar, reben el nom de disjuncionsboreoalpines i troben la seva explicació en els canvis climàtics esdevinguts durant les glaciacions del quaternari. Durant el darrer període glacial, l’avenç del gel i el fred va impulsar cap al sud moltes espècies pròpies de la tundra i, per tant, adaptades al fred (en el cas, és clar, d’aquells individus que aconseguiren de fer-ho, ja que la resta moriria). Aquells supervivents s’anirien refugiant, en el seu descens, en noves terres en les quals aconseguirien sobreviure tot i l’empitjorament del clima.
Ara bé, al final del període fred aquestes terres meridionals passaren a ser cada cop més inhòspites (pel fet de ser cada cop més calentes i més seques) per a aquelles espècies que continuaven sent pròpies de zones fredes. De manera que aquells organismes només van sobreviure en aquells indrets en els quals, a causa de l’altitud, el clima es mantenia fred, és a dir, als cims i a les parts elevades de les muntanyes. Dit d’una altra manera: les parts culminants de les grans serralades han actuat com a autèntiques illes refugi davant dels canvis climàtics. I si, a més, tenim en compte que per l’acció combinada de la latitud i de l’altitud a igual altura el fred és més intens a les muntanyes més septentrionals, podem comprendre per què les espècies que aquí trobem als cims de les muntanyes viuen entre els 400 o 500 metres sobre el nivell del mar al nord de Polònia i a les terres baixes, pràcticament fins arran de mar, al nord d’Escandinàvia.
El cas contrari de les espècies cosmopolites és el de les espècies que tenen una àrea de distribució molt petita, que només viuen en una zona molt restringida. En aquests casos es parla d’espècies estenòcores o endèmiques o, simplement, d’endemismes. Es tracta d’espècies especialment vulnerables que necessiten una protecció especial, altrament corren un greu perill d’extinció. D’espècies desaparegudes per aquesta causa en tenim molts exemples, com ara el dodo, un ocell de més de 20 kg, incapaç de volar, que habitava les illes Mascarenyes, a l’oceà Índic, fins que la cacera abusiva el va extingir l’any 1681. Per la mateixa raó van desaparèixer les diverses espècies de moes –les més grasses de les quals, incapaces de volar, pesaven més de 200 kg i es van extingir a Nova Zelanda en època moderna– o, a Madagascar, l’Aepyornis maximus, l’ocell més gros de tots, amb quasi 3 m d’alçada, i que ponia ous de la mida d’una pilota de futbol.
Les barreres geogràfiques que delimiten les illes, les altes muntanyes o les coves afavoreixen que aquests llocs siguin un dels espais biogeogràfics on més abunden els endemismes. Va ser Charles R. Darwin qui va fer notar l’abundància d’endemismes a les illes Galápagos, i en va deduir arguments de pes per a la teoria de l’evolució. Però no cal anar tan lluny, ja que en tenim exemples ben propers.
Ferreret (Alytes muletensis), gripau endèmic de l’illa de Mallorca.
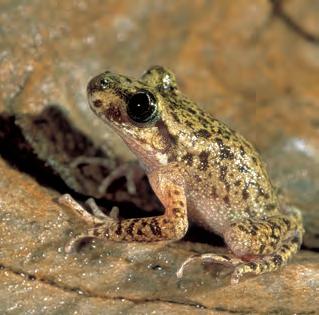
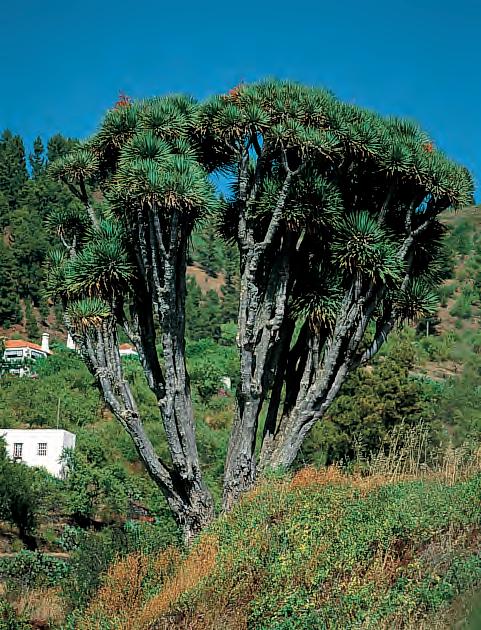
Algunes vegades les espècies endèmiques estan limitades a uns pocs quilòmetres quadrats de superfície, tal com succeeix amb les sargantanes del gènere Podarcis, les quals habiten als illots costaners de les illes Balears. Però a les illes Balears hi ha moltes altres espècies endèmiques, com ara el ferreret (Alytes muletensis), un petit gripau que és exclusiu de les tolles dels torrents de les muntanyes de Mallorca (descobert l’any 1980), i el Myotragus, un bòvid nan que hi va abundar fins que es va extingir, ja en època prehistòrica, ara fa aproximadament 5000 anys. Entre les plantes endèmiques hi ha l’estepa joana, el ciclamen baleàric o les boniques flors del Senecio rodriguezii i de la Paeonia cambesedesii. A les Canàries, entre altres exemples notables d’endemismes, hi ha un arbre, el drago; la hubara, un ocell, i el llangardaix gegant o llangardaix de Salmor (Gallotia gallotia), de gairebé 1 m de longitud.
Drago, arbre endèmic de les illes Canàries.
7.3. Fòssils vivents
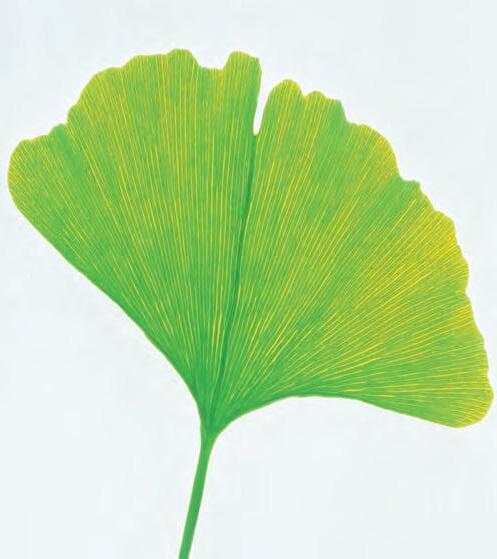
Molts caràcters morfològics del ginkgo són considerats força primitius, com ara la nervació amb bifurcacions binàries (dicotòmica) que mostra la il·lustració.
Les reduïdes àrees de distribució d’una espècie endèmica poden tenir dos orígens diferents: pel fet que l’espècie s’hagi originat recentment, de manera que no hagi tingut temps encara d’expansionar-se, o, contràriament, pel fet que l’espècie es trobi en regressió o, fins i tot, en perill d’extinció. És a dir, pot tractar-se del començament o del final d’una història evolutiva. En aquest segon cas, pot tractar-se d’una espècie molt antiga que en un altre temps havia tingut una àrea de distribució molt més gran, però que no s’ha pogut adaptar als nous canvis ambientals i s’ha anat extingint fins a quedar reduïda a la petita extensió actual, el darrer testimoni d’una espècie en via d’extingir-se. D’aquestes espècies se’n diu espècies relictes o fòssils vivents. Són testimonis encara presents de la fauna i de la flora del passat, potser fins i tot relíquies de grups biològics que es consideraven extingits. En són exemples el celacant o latimèria, la tuatara, el nàutil i el límul o, entre els vegetals, l’arbre Ginkgo biloba
Per la seva banda, els factors ambientals sovint canvien gradualment al llarg de la geografia. Aquests gradients fan que en la seva adaptació a l’ambient determinats caràcters dels organismes presentin clines, és a dir, variacions graduals i paral·leles al gradient en la intensitat d’un determinat paràmetre climàtic. Per exemple, un mateix caràcter que en un indret determinat suposa una adaptació perquè protegeix del fred ho serà també si és una mica més intens uns centenars de quilòmetres més al nord, on l’hivern és més dur. En canvi, en una zona més meridional, més càlida, la millor adaptació consistirà a presentar aquell caràcter molt disminuït. Tot plegat explica freqüents regularitats que salten a la vista quan s’observa amb atenció la distribució dels organismes. Algunes d’aquestes regularitats han rebut el nom de lleis biogeogràfiques. De fet, no tenen la mateixa naturalesa que les lleis de la física o de la química, i no són pas universals; al contrari, admeten molts matisos i excepcions. Però si les sabem considerar amb aquesta relativitat, ajuden a comprendre la natura, perquè ens aporten una mica d’ordre i de lògica a la ment, que sovint queda perduda davant la diversitat i l’enorme complexitat de la natura. Algunes d’aquestes lleis climàtiques són la regla de Bergmann i la regla d’Allen
Les espècies pròximes d’animals de sang calenta, i també les subespècies, quan es diferencien per la grandària, es distribuixen al llarg de la superfície terrestre de tal manera que les més corpulentes habiten les zones més fredes. Per exemple, les guineus, les llebres o els pardals del sud d’Europa són més petits que els d’Escandinàvia. La raó d’aquesta regularitat rau en l’avantatge que comporta un augment de volum en un clima fred, ja que facilita la conservació de la calor. De fet, com que el volum d’un cos augmenta en proporció al cub de la seva dimensió lineal, i la superfície augmenta en proporció al quadrat, es redueix la superfície del cos amb relació al seu volum. A més, cal afegir-hi l’avantatge que comporta l’augment de vigor associat a la corpulència.
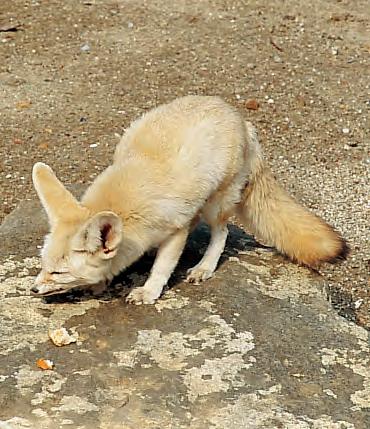
Relacionada amb la regla anterior, aquesta regularitat indica que en les espècies o subespècies pròximes d’animals de sang calenta les dimensions dels apèndixs corporals homeoterms (orelles i cua) són, amb relació a les del cos, més grosses en les formes que habiten països càlids que en les que viuen en regions fredes. En aquest cas, cal buscar l’explicació en el fet que aquells apèndixs actuen eficaçment com a radiadors de calor. Permeten dissipar la calor i, per tant, refrigerar el cos en llocs calorosos; en canvi, serien totalment contraproduents en indrets freds.
El fet que el fennec visqui als deserts africans està relacionat amb la grandària de la seva cua i les seves orelles, molt grosses respecte al cos, ja que aquests apèndixs li serveixen per dissipar la calor i refrigerar el cos.
L’evolució biològica ha portat també l’espècie humana a adaptar-se a les condicions ambientals diferents. Per aquest motiu també nosaltres complim les regles de Bergmann i d’Allen. La massa corporal –tal com mostra aquest gràfic de la relació entre el pes corporal i la variació de la temperatura mitjana actual– té una correlació directa amb la temperatura mitjana anual.
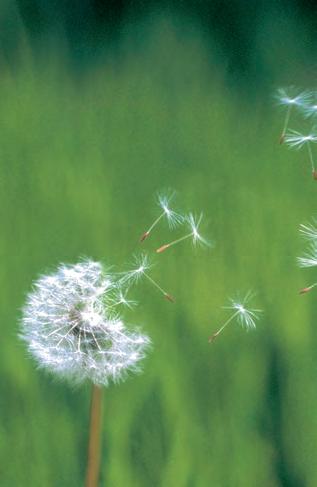
El plomall, o vil·là, d’alguns fruits, com ara el d’aquest pixallits, facilita que les llavors siguin dispersades pel vent.
L’expansió de l’àrea de distribució d’una espècie pot ser molt ràpida. Tal com va assenyalar Darwin, per exemple, els cavalls van ser introduïts a Amèrica del Sud, concretament a l’àrea de Buenos Aires, l’any 1537 pels espanyols, i el 1580 ja havien arribat a l’estret de Magallanes. Això va ser possible gràcies a l’actuació humana, que va contribuir a l’expansió de l’espècie mitjançant un desplaçament actiu. En altres ocasions, però, les causes de l’expansió d’una espècie (per exemple en el cas de les plantes) són força més subtils i el desplaçament es fa d’una manera passiva.
S’anomenen mecanismes de dispersió els mitjans pels quals les espècies biològiques poden desplaçar-se i eixamplar les seves àrees de distribució. Són bàsicament quatre: dispersió pel vent o anemocòria; dispersió per mitjà dels moviments de l’aigua, especialment pels corrents marins, o hidrocòria; dispersió per mitjà dels animals o zoocòria; dispersió per mitjà de l’acció humana. Aquest últim sistema de dispersió és cada vegada més important i l’estudiarem en la unitat4.
L’anemocòria és la dispersió de plantes o animals, o dels seus gèrmens, per la força del vent. Com més petit és un organisme, més susceptible serà de ser transportat per l’aire. Entre les plantes, aquelles que tenen les llavors més petites són sovint disseminades a grans distàncies per mitjà d’aquest procediment. És el cas de les orquídies, de sements petitíssimes (en calen vint mil per fer un gram de pes).
Per facilitar la dispersió, moltes plantes disposen de flotadors aeris. Aquest és el cas ben conegut de plantes com el pixallits o dent de lleó, que té les llavors rodejades d’un embolcall de pèls, i el vil·là. Aquestes plantes actuen com un autèntic paracaigudes ja que augmenten la sustentació de la sement i n’afavoreixen, per tant, la capacitat de desplaçament en el medi atmosfèric. També és el cas dels fruits i llavors amb sàmares, prolongacions membranoses en forma d’ales que en faciliten la dispersió.
Entre els animals dispersats pel vent són comunes les formes de resistència, com en el cas dels efipis (ous) de les dàfnies o puces d’aigua dolça, o les formes enquistades d’altres invertebrats, que mantenen cèl·lules germinals en vida en un entorn advers. Molts insectes alats són arrossegats per les tèrmiques i les turbulències i acaben traslladats més lluny d’allà on la seva capacitat de vol els hauria portats. Algunes aranyes se situen en un lloc on faci aire i secreten un fil de seda, com quan fan una teranyina, però sense enganxar-lo enlloc. Quan el fil comença a voleiar, l’aranya en segrega més i més fins que una ventada se l’enduu. Les molses, les floridures, els llevats i tota mena de microorganismes es propaguen de forma eficaç a causa de la dispersió de les seves espores per mitjà del vent. El fenomen és més
important que no sembla a primera vista: es calcula que en una columna d’atmosfera d’1 km2 de base i 4000 metres d’altura hi ha uns 10 milions de petits animalons.
En aquells ambients on el vent bufa amb força i no hi ha gaires obstacles, els moviments de l’aire poden arrossegar els vegetals arran de terra. Algunes plantes del desert –o d’ambients esteparis oberts–són transportades d’aquesta manera molt lluny per l’acció continuada del vent, rodant per terra com una pilota. A vegades, els organismes arrossegats per la força del vent són de dimensions força sorprenents. Encara que excepcionals, són ben documentades en aquest sentit les pluges ocasionals de peixos i granotes. En aquest cas, els animals són absorbits per alguna depressió atmosfèrica violenta i arrossegats atmosfera enllà. Malgrat la magnitud del fenomen, sovint aquesta mena de transport no implica pas la mort dels viatgers, de manera que en constitueix una singular, però efectiva, dispersió.
La importància de la hidrocòria o disseminació per l’aigua és enorme i moltes plantes i animals han arribat als indrets on ara habiten per mitjà d’aquest sistema de transport. Els corrents marins transporten les sements i els fruits flotants dels vegetals costaners i riberencs. Aquest és l’origen de moltes de les espècies vegetals de les illes oceàniques, com en el cas del cocoter, els fruits del qual suren en l’aigua marina malgrat el pes i hi resisteixen llargs viatges sense malmetre’s. En el segle XIX, Charles R. Darwin va realitzar –impulsat pel desig de fonamentar la seva explicació del caràcter evolutiu de la vida– una sèrie d’experiències per demostrar la capacitat de dispersió de l’aigua. De 87 tipus diferents de llavor que va posar en remull en aigua de mar, 64 van conservar llargament la seva capacitat de germinació. Germinaren després d’haver romàs en aigua per espai de 28 dies o, fins i tot, en alguns casos, 137 jornades. De manera similar, un cargol terrestre aguanta fins a 15 dies en aigua salada, mentre que les avellanes encara poden germinar tres mesos després d’haver estat posades en remull en aigua de mar.
També cal tenir en compte la capacitat dels corrents d’aigua per arrossegar troncs, fustes, masses o restes de vegetació. El fenomen és especialment important als rius tropicals, que porten sovint grans masses de vegetació que es desprenen de la riba i romanen flotant en el seu viatge aigües avall com autèntics rais naturals. A vegades de dimensions considerables, aquests rais
La capacitat dels corrents d’aigua per arrossegar restes de vegetació contribueix a la dispersió de les espècies.
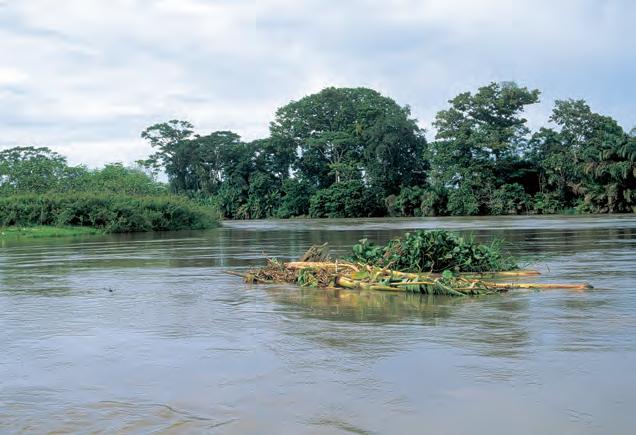
poden hostatjar, a més d’un bon nombre de llavors, alguns vertebrats de dimensions reduïdes i una gran varietat de petits animalons. Si el viatge no és gaire accidentat, moltes d’aquestes formes de vida poden arribar vives al seu destí. Tal com passa amb la hidrocòria, a vegades els viatgers no són pas petits. Els óssos polars, per exemple, poden desplaçar-se involuntàriament d’una manera similar en una altra mena de rais naturals: els icebergs. És sobre aquestes plataformes flotants que arriben ocasionalment a les costes d’Islàndia.
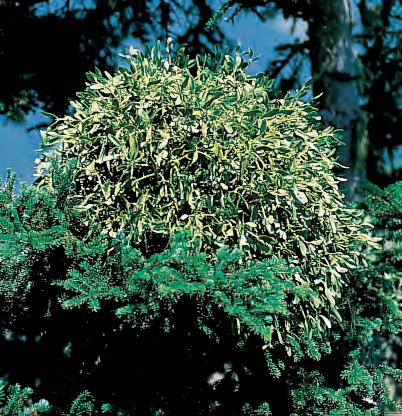
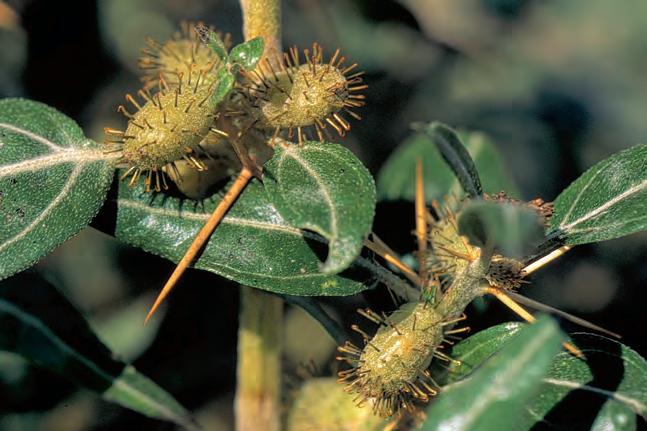
Els fruits enganxosos, com ara els del vesc de la il·lustració superior o les llufes de la il·lustració inferior, són fàcilment dispersats pels animals.
És freqüent que els fruits o les llavors quedin enganxats al cos dels animals, especialment al bec –com en el cas dels enganxosos fruits del vesc– o entre el fang de les potes. Darwin també va fer experiments en aquest sentit, els quals, si bé senzills, van ser concloents. Va observar que d’una única boleta de fang que una perdiu portava adherida a la pota en germinaren 82 plantes! De fet, és força freqüent que les plantes tinguin llavors amb ganxos, dents o espines (és ben conegut el cas de les llufes) i que s’enredin entre el pelatge o les plomes dels animals. També contribueixen a la dispersió de les plantes els animals que, com ara les formigues o els esquirols, acumulen reserves alimentàries que no sempre consumeixen. L’expansió dels paràsits, que viatgen de forma passiva transportats pels seus hostes, també es pot considerar una forma de zoocòria. Un altre aspecte de la zoocòria és el de les plantes que tenen fruits carnosos que són menjats pels animals. Sovint l’animal no pot pas digerir el pinyol dur que, tanmateix, guarda la llavor. Quan l’animal l’expulsa amb els excrements està contribuint a la dispersió de la planta, ja que això pot succeir a força distància del lloc d’origen. Passejant pel camp a l’hivern és ben freqüent, per exemple, trobar els excrements de la guineu tenyits del color vermellós dels fruits de la gavarrera (o roser boscà). En aquest cas es produeix una clara relació de benefici mutu: l’animal troba en els fruits de la gavarrera un dels pocs aliments disponibles a l’hivern, i el roser boscà disposa d’una manera ben eficaç de dispersar les llavors. Moltes altres plantes presenten estratègies similars i l’adaptació mútua entre l’animal i la planta pot arribar a ser molt notable. Sovint el pas pel tub digestiu de l’animal no sols no comporta cap problema per a la llavor, sinó que, al contrari, l’acció reblanidora dels ferments digestius pot ser indispensable per desfer les cobertes del pinyol i fer possible la germinació de la llavor.
1.13. D’acord amb l’explicació de les causes de les disjuncions boreoalpines, dibuixa en un mapa físic d’Europa les següents àrees de distribució de la papallona apol·lo:
a) L’àrea de distribució abans de començar la darrera glaciació, quan el clima era similar a l’actual.
b) L’àrea de distribució ara fa uns 18000 anys, en el màxim període de glaciació (període solutrià).
c) L’àrea de distribució actual.
1.14. Amplia, mitjançant Internet o una recerca bibliogràfica, la teva informació sobre els fòssils vivents esmentats en el text. Busca quina mena d’organismes són, on es troben, amb quins grups d’organismes fòssils estan emparentats (i l’època en què aquests vivien) i també digues el nom d’altres fòssils vivents no esmentats en el text.
1.15. Està demostrat que els mamífers que s’enterren no solen complir la regla de Bergmann. Tracta de donar una explicació adaptativa coherent a aquest fet.
1.16. La denominada regla de Rensch afirma que la «grandària» de la «niuada» en una espècie determinada augmenta amb la latitud. Si bé no hi ha acord entre els científics sobre quines són les causes que ho expliquen, és ben cert que aquesta regla es compleix sovint. Quines explicacions adaptatives creus que, tal vegada, ho justifiquen?
1.17. Darwin va observar que a les illes oceàniques hi havia moltes espècies endèmiques, per exemple els pinsans de les Galápagos. De totes maneres, aquestes espècies de pinsà eren força semblants a les que hi ha al continent sud-americà.
a) Explica, en termes evolutius, aquests fets.
b) Hi ha cap explicació que no tingui en compte l’evolució? Quina?
1.18. Posa exemples d’endemismes no esmentats en aquesta unitat i indica’n la distribució geogràfica.
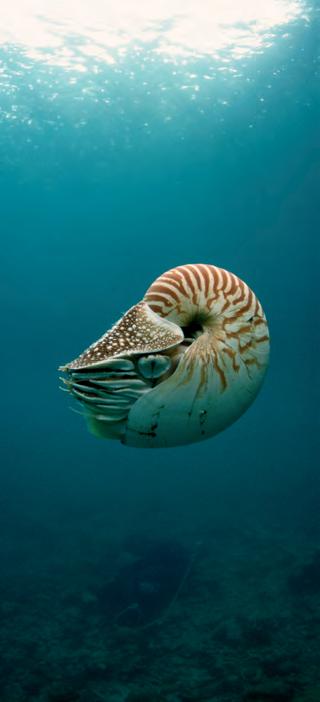
El nàutil, que és un mol·lusc cefalòpode de l’ordre dels nautiloïdeus, és un exemple de fòssil vivent.
Dies, per any, amb temperatura mitjana inferior o igual a 0 °C
Dies, per any, amb temperatura mitjana superior o igual a 25 °C
Dies, per any, amb temperatura mínima inferior o igual a 0 °C
Dies, per any, amb temperatura màxima superior o igual a 25 °C
1.19. La taula de dalt permet comparar les temperatures al llarg de l’any en un alzinar i en un camp proper. Estudia-les i, en acabat, contesta a les qüestions següents:
a) Dóna’n una explicació global.
b) Per què hi ha més diferències entre les temperatures màximes o les mínimes que entre les mitjanes?
c) On hi ha les diferències més acusades? Per què?
d) On trobaran els animals millor refugi davant les oscil·lacions de la temperatura? Concorda això amb el que saps dels animals dels alzinars i les pinedes?
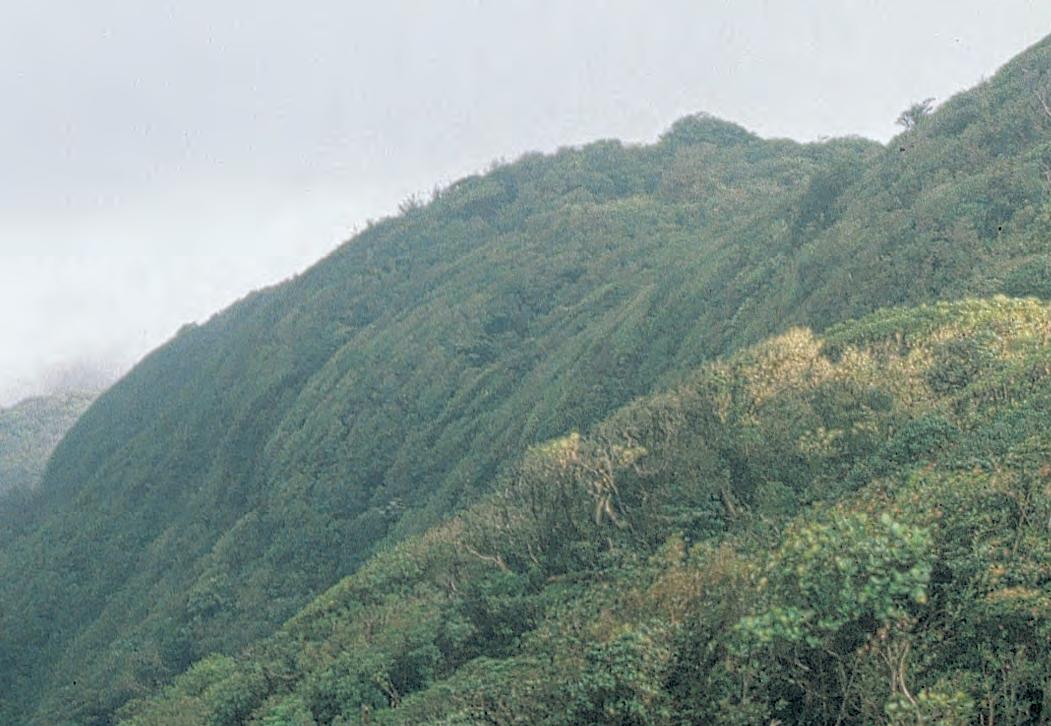
1.20. La il·lustració del peu de pàgina correspon al Bosque Nuboso de Monteverde, al centre de Costa Rica, a l’Amèrica Central. Si l’observes amb atenció, veuràs que la vegetació està tota inclinada cap a la carena de la muntanya. Aquesta carena és a la divisòria d’aigües entre l’oceà Pacífic i l’oceà Atlàntic. Els vents alisis no paren de bufar durant mesos i són els responsables d’aquesta forma curiosa en la vegetació. Raona quins efectes ocasiona en la humitat i en la vegetació de la zona el fet que l’aire de l’oceà superi aquest desnivell.
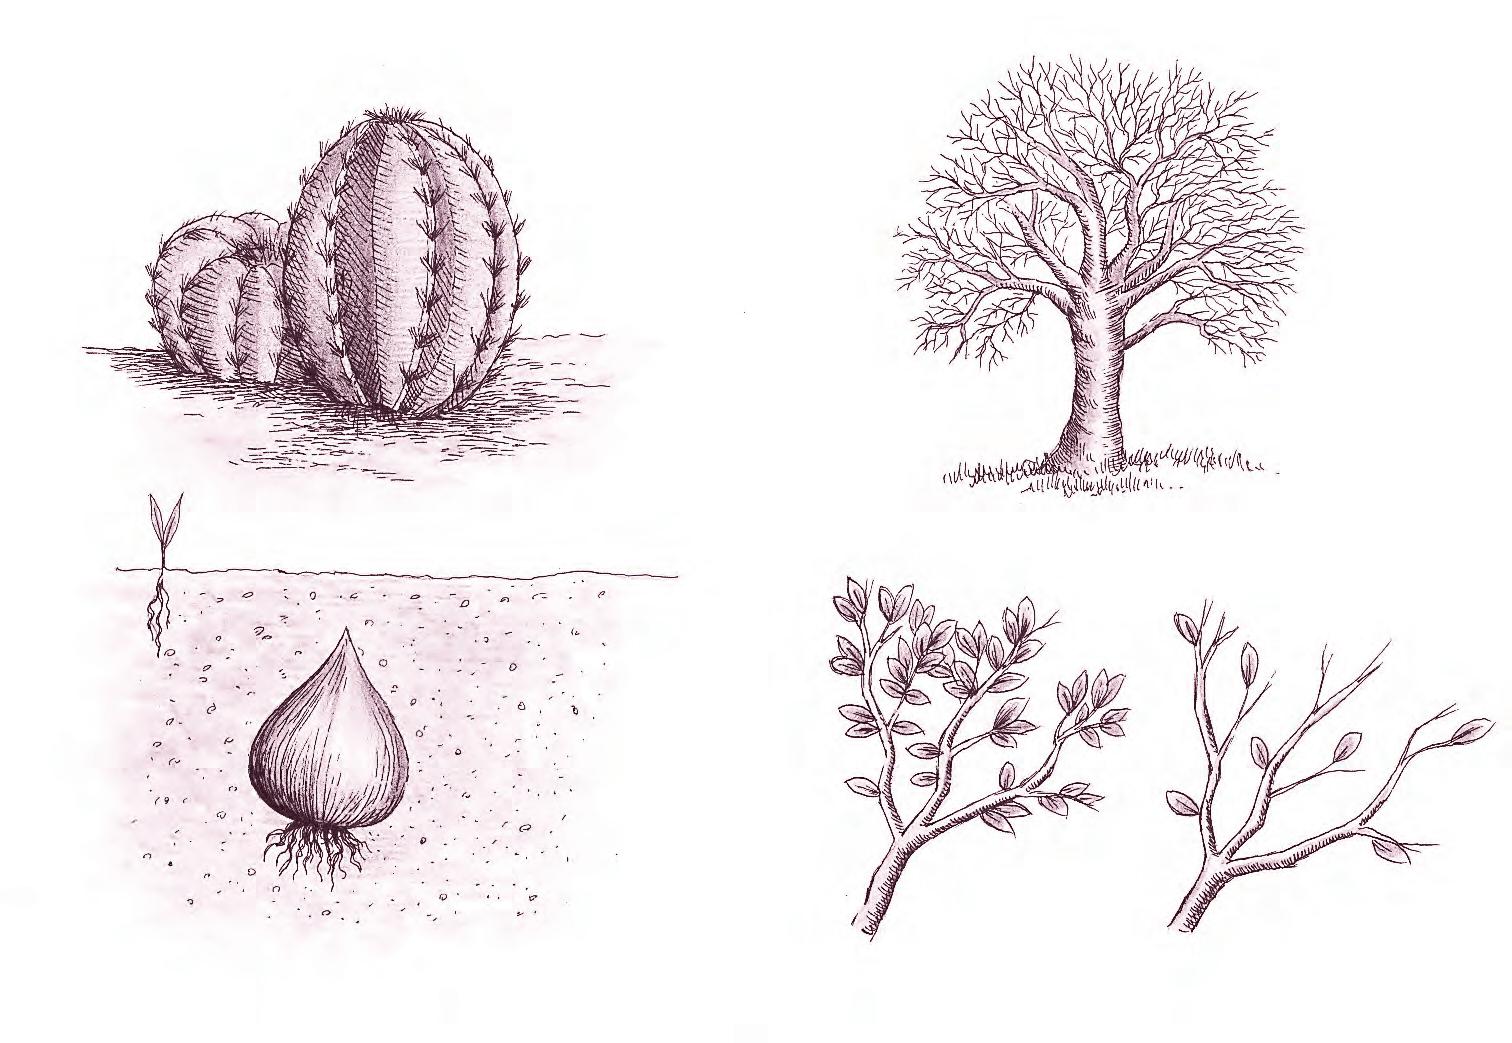
1.21. Comenta la forma i l’aspecte de les plantes de la il·lustració de dalt. En el cas de la lleterassa, tingues en compte els canvis estacionals.
1.22. El gràfic del costat mostra la variació vertical de la distribució d’oxigen, de nit i de dia, en l’aigua d’un llac. A la zona superficial hi ha abundància d’algues microscòpiques. A la zona profunda hi ha bacteris, alguns animals i una gran quantitat de matèria orgànica sedimentada.
a) Interpreta la diferència entre la distribució d’oxigen entre el dia i la nit en la zona superficial.
b) Fes el mateix amb la zona profunda.
c) Què passaria amb l’oxigen si es produís una gran producció de matèria orgànica (eutròfia) com a conseqüència d’un important abocament d’aigües riques en nitrats o fosfats al llac?
d) Com seria la concentració d’oxigen al fons d’un llac amb baixa producció de matèria orgànica (oligotròfic), com per exemple un llac d’alta muntanya del Pirineu?
d’oxigen
1.23. En l’estudi dels ecosistemes, els transectes (inventaris d’un conjunt d’àrees del terreny) s’utilitzen habitualment per fer mostratges de les comunitats vegetals. En aquests estudis se solen mesurar diverses variables ambientals. A la taula de peu de pàgina es presenten algunes dades d’un transecte al llarg d’un sistema de dunes litorals. Estudia-la i contesta a les preguntes que hi ha a continuació:
a) Quina localitat tindrà, probablement, més riquesa d’espècies animals?
b) A mesura que ens allunyem de la línia de costa, les localitats de la taula presenten diferències pel que fa a la riquesa d’espècies, les característiques del sòl i la cobertura vegetal. Redacta una explicació lògica d’aquest fet.
c) Una adaptació comuna de les plantes que viuen en sòls amb altes concentracions salines és l’acumulació de moltes sals als teixits, fins a arribar a tenir concentracions més altes que les del sòl. Explica per què aquest fet facilita que puguin absorbir aigua del sòl.
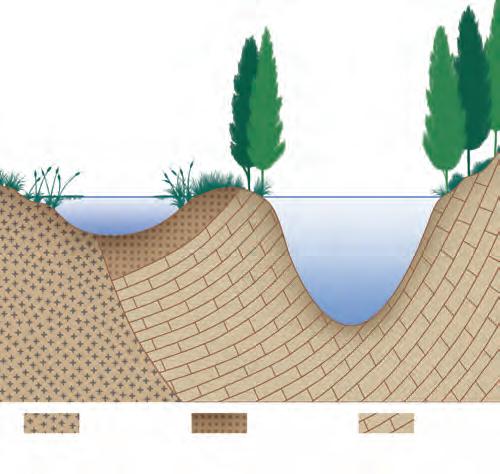
1.24. El dibuix del costat representa dues basses (A i B) força diferents. En cada bassa hi habita una comunitat. El gràfic mostra la variació de la temperatura amb relació a la fondària en cada bassa, en un dia d’estiu. Contesta a les preguntes següents:
a) Què és una comunitat?
b) Raona per què les comunitats de les dues basses pot ser que siguin força diferents.
c) Quina línia del gràfic correspon a cada bassa?
d) S’ha trobat una espècie d’animaló que només pot viure entre 15 °C i 18 °C. A quina bassa viu? Per què?
e) Si es tallessin tots els arbres que envolten la bassa B, això comportaria, amb el temps, canvis en la comunitat d’organismes aquàtics de la bassa?
1.25. Relaciona els termes de les dues columnes:
Distància des del mar (en metres)
Contingut salí del sòl (g de clorurs/dm3)
Percentatge de recobriment vegetal
Nombre d’espècies (plantes)
Percentatge de matèria orgànica al sòl
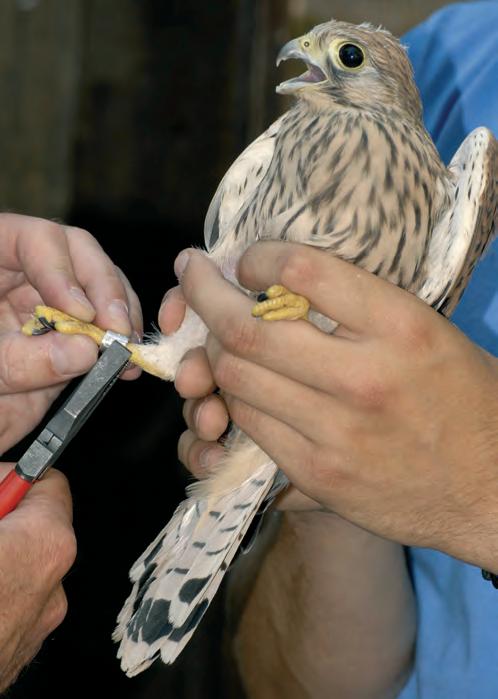
1. L’anellament dels ocells és un tècnica que dóna molt bona informació sobre la biologia d’aquests animals. Consisteix a capturar-los i, un cop identificats amb una anella petita i lleugera que se subjecta en una pota, deixar-los anar. Si tornen a ser capturats es pot esbrinar el trajecte que han fet. En un programa d’anellament de rossinyols portat a terme al Maresme es van fer, al llarg d’un any, les captures que indica el gràfic de la dreta.
a) Explica les dades del gràfic, és a dir, la desaparició hivernal, la presència a la primavera i a l’estiu i el màxim al començament de la tardor.
b) Copia el text que hi ha a continuació i omple els buits amb les paraules següents: àrea de cria, èpoques, hivern, hiverna, migracions, primavera, sedentaris, sud, tardor
Alguns ocells són …, és a dir, romanen tot l’any al mateix indret. Altres, en canvi, efectuen … anuals. Aquests darrers realitzen un viatge prenupcial a la primavera que els porta a l’… i un altre de postnupcial a la tardor que els duu a les àrees de repòs hivernal de clima més suau, on passaran l’…
Això fa que alguns ocells es trobin entre nosaltres solament durant algunes … de l’any. Així, per exemple, el cucut –que … a l’Àfrica tropical– arriba aquí a la … . Novament, tot just s’acosta la … , torna a emprendre la marxa cap al …
c) Dibuixa en un mapa mut les rutes migratòries d’alguns ocells comuns, com ara l’oreneta, la cigonya, el cucut, etc. i les d’altres ocells no tan coneguts, però igualment viatgers, com ara la fredeluga, l’abellerol, el camallarga, la grua, etc.
d) Copia en un mapa mut d’Europa l’àrea de distribució d’alguna espècie d’ànec i distingeix amb colors diferents les àrees d’hivernada de les zones de nidificació. Descriu també els desplaçaments estacionals.
2. Les illes, a més de tenir moltes espècies endèmiques, són sovint paradisos de biodiversitat.
a) Raona si és el mateix una cosa i l’altra. Hi pot haver molta biodiversitat sense endemismes? Hi pot haver endemismes destacats en llocs amb una diversitat estàndard?
b) A Sierra Nevada hi viu la conífera Abies pinsapo, semblant als avets, que és endèmica d’aquestes muntanyes. Explica com pot haver-se produït aquesta situació.
c) A les muntanyes de les selves tropicals, sovint aïllades entre si per grans extensions de vegetació, hi trobem una biodiversitat molt alta. Explica per què és així i raona la resposta.
3. El dibuix que hi ha a peu de pàgina mostra la distribució de la vegetació en un determinat indret del Pirineu (1-9). Observa’l i respon a les preguntes següents:
a) Quins factors ambientals influeixen més en aquesta distribució de les comunitats vegetals?
b) Hi ha cap regularitat en la distribució de les comunitats? Les podríem trobar ordenades d’una altra manera?
c) Com s’explica que les comunitats 2 i 4, tot i trobar-se a altituds similars, siguin diferents?
d) Formula una hipòtesi que expliqui per què no hi ha arbres a les comunitats 7, 8 i 9.
e) La naturalesa del sòl influeix, tal com mostra el dibuix, sobre la distribució de les plantes. Completa la teva informació i digues què significa, en aquest sentit, que una planta és basòfila, calcícola, acidòfila o silicícola. Posa’n exemples.
4. Redacta un text en què figurin tots els termes següents: adaptació, àrea de cria, àrea de distribució, àrea d’hivernada, ecosistema, fenologia, homeoterm, migració, oreneta i temperatura
5. El gràfic del costat mostra que la intensitat de llum disminueix com més ens enfonsem. Observa’l junta-
ment amb la il·lustració d’un litoral marí que hi ha a la pàgina 12 i respon a les preguntes que hi ha a continuació:
a) Digues si la llum és un factor important en la distribució dels organismes del litoral marí. Quines conseqüències té la distribució vertical de la llum?
b) Per a aquests organismes del litoral marí, hi ha altres factors ambientals d’igual o més importància? Quins?
c) Per què les algues que es troben a diferents nivells tenen una coloració diferent?
Esquema
1.La nutrició de les plantes verdes
2.La nutrició dels fongs i dels bacteris
3.La nutrició dels animals
4.Les relacions interespecífiques
5.Els nivells tròfics i les relacions tròfiques
6.La dinàmica i la producció dels ecosistemes
Al sòl d’un bosc hi viuen organismes descomponedors que, en darrer terme, fan possible que les plantes obtinguin moltes de les substàncies minerals que necessiten.
Els animals han d’ingerir matèria orgànica per viure. Per aquesta raó diem que són organismes de nutrició heteròtrofa (del grec heteros, que vol dir ‘diferent’, i trophos, que vol dir ‘aliment’, ‘alimentar-se’; per tant, alimentar-se d’altres coses, de coses diferents). Les plantes, en canvi, poden produir la seva pròpia matèria orgànica. Per això diem que són autòtrofes (del grec autos, que vol dir ‘mateix’, ‘a si mateix’, i trophos, que vol dir ‘aliment’, ‘alimentar-se’; per tant, alimentar-se a si mateix). Aquest és un concepte que cal entendre bé per comprendre com funciona la natura.
La finalitat de tot bon mètode científic és reduir la ciència a la qual s’aplica als seus últims termes, elevant les proposicions que comprèn fins a la màxima generalització de què són susceptibles.
GEORGES CUVIER, Lliçons d’anatomia comparada (1798)
Les plantes produeixen matèria orgànica. Però quines són les seves necessitats nutritives? Com ho podem saber? De fet, algunes observacions ens permeten afirmar que les plantes produeixen matèria orgànica sense agafar-ne de terra. Vegem-ne alguns exemples:
a) Una primera observació va ser la del metge belga Jan Baptista van Helmont (1577-1644), el qual, per intentar trobar resposta a la pregunta «d’on treuen aliment les plantes?», va plantar un salze de 2,25kg en un gros recipient amb 91 kg de terra i el va regar cada dia durant cinc anys. Passat aquest temps, va comprovar que el salze pesava 77 kg, mentre que la terra només havia perdut 75 g. Van Helmont pensava que l’arbre produïa la seva pròpia matèria orgànica, ja que si hi havia aproximadament la mateixa terra al test, els 77 kg de salze no venien de la terra. A partir d’aquell resultat va concloure, erròniament, però, que el salze transformava l’aigua en la seva pròpia matèria orgànica.
b) Una segona observació ens ve donada pel següent recull de dades:
Producció de matèria vegetal
1a mesura 2a mesura
Camp d’alfals Es van sembrar 15kg/ha a la primavera.
Bosc de roures
200 t/ha.
Es van recollir 9t/ha a l’estiu.
Es van recollir 219 t/ha al cap d’un any.
Per mitjà de certes experiències i activitats d’observació senzilles, és fàcil de comprovar que les principals necessitats de les plantes, pel que fa a energia i matèries primeres, són les següents: aigua, sals minerals, llum i CO2.
Les plantes necessiten aigua per mantenir-se en bon estat i en prenen a través de les arrels. Concretament absorbeixen aquesta aigua per una regió de l’arrel que, pel fet de tenir molts pèls absorbents, es denomina zona pilífera. D’altra banda, l’evapotranspiració, o eliminació de l’aigua que circula per les plantes, es produeix, principalment, a tra-
La composició aproximada de l’aire atmosfèric sec és la següent:
Diòxid de carboni 0,033% Altres 0,003%
L’atmosfera conté, a més a més, entre un 0 i un 4% d’aigua. RECORDA
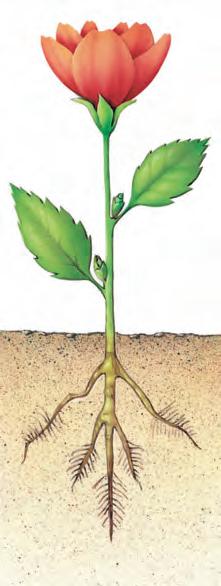
1.Flor. Conté els òrgans sexuals. Produeix els fruits i les llavors.
2.Gemma. Conté brots petits (fulles i flors a punt de créixer).
3.Fulla. Produeix l’aliment de la planta durant la fotosíntesi.
4.Tija. Manté la planta erecta i fa circular les substàncies amunt i avall.
5.Arrel principal i arrel lateral. Fixen la planta a terra i absorbeixen aigua i sals minerals.
6.Pèls absorbents.
7.Nivell del sòl.
vés de les fulles; per tant, si falten les fulles, la pèrdua d’aigua es redueix força.
A part de l’aigua, les plantes verdes necessiten sals minerals. Sense sals minerals una planta es mor o creix molt pitjor que una planta cultivada amb les sals minerals que li calen.
Les plantes també necessiten llum. Una planta mal il·luminada grogueja i creix malament, i sense gens de llum no pot viure i mor.
Però a més de tot això, les plantes verdes necessiten diòxid de carboni (CO2), un gas present a l’atmosfera. No és fàcil demostrar aquesta necessitat amb un experiment senzill. De fet, als botànics els ha costat segles d’estudi comprendre com s’alimenten les plantes; però a partir de les dades d’un experiment de laboratori (reflectides en el gràfic de sota), concloem que la planta –la tomaquera, en aquest cas–creix més amb una presència de diòxid de carboni més elevada.
0,1% de diòxid de carboni
0,03% de diòxid de carboni
Dies
Creixement d’una tomaquera. Quant pesa, en cada cas, la tomaquera al cap de 20 dies? Com s’explica?
De totes les evidències anteriors hem de concloure que les plantes verdes produeixen la pròpia matèria orgànica en presència de llum i a partir de substàncies minerals (matèria inorgànica), com ara aigua, sals minerals i diòxid de carboni. Per això, es diu que les plantes, per la seva capacitat de fer-se la matèria orgànica, tenen una nutrició autòtrofa.
Aquest procés té lloc a les parts verdes de les plantes, les fulles, que contenen un pigment verd, la clorofil·la, el qual és necessari perquè el procés es porti a terme. Aquest procés és la funció clorofíl·lica o fotosíntesi. Fotosíntesi significa ‘fer coses amb la llum’ i això és el que fan precisament les plantes: utilitzen la llum per fer aliment a partir de diòxid de carboni, d’aigua i de sals minerals. És a dir, les plantes s’alimenten exclusivament de substàncies minerals que prenen a través de les arrels i les fulles. La fotosíntesi va acompanyada de l’expulsió del gas oxigen.
Esquemàticament, les reaccions químiques d’aquest procés es poden resumir de la manera següent:
llum + substàncies inorgàniques (H2O, CO2 + sals minerals)
A la fulla es produeix glucosa, que és enviada arreu del vegetal.
Es desprèn oxigen de la
L’aigua i les sals minerals procedeixen del sòl i són absorbides per les arrels.
De fet, algunes plantes són paràsites d’altres vegetals, com ara el vesc, que viu sobre els arbres, o els frares, que parasiten diverses herbes i mates. En el cas del vesc, la planta conserva el color verd i s’alimenta en part de manera autòtrofa i en part de les substàncies que xucla de l’arbre; és, doncs, un paràsit a mitges o hemiparàsit.
En canvi, en el cas dels frares, que són de color terrós o vermellenc perquè no tenen clorofil·la, l’alimentació és completament heteròtrofa: les arrels del paràsit xuclen la matèria orgànica de les arrels de les plantes parasitades.
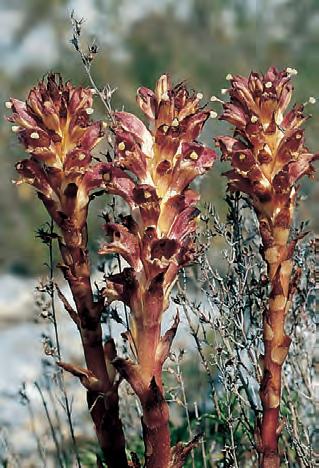
A diferència de les plantes, els fongs no necessiten la llum per viure ni són capaços de produir el seu aliment. Al contrari, els fongs necessiten la matèria orgànica per viure, és a dir, han de prendre –igual que els animals– la matèria orgànica que han de menester. Per tant, es diu que són –com els animals– organismes de nutrició heteròtrofa. Els xampinyons sovint es cultiven en caves o galeries, com ara mines, en completa foscor, la qual cosa demostra el que acabem de dir, que no necessiten llum; en canvi, a diferència de les plantes, cal cultivarlos sobre matèria orgànica.
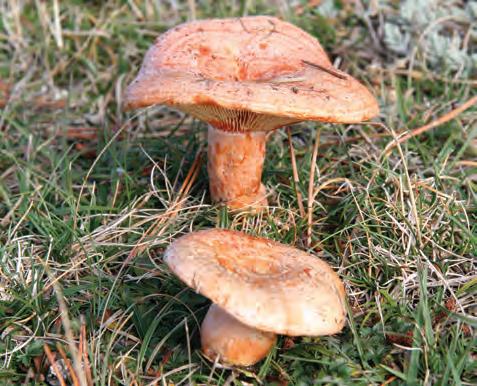
Tots els fongs es nodreixen de matèria orgànica. Per tant, són organismes heteròtrofs. Alguns, com el rovelló (a la il·lustració de dalt a l’esquerra), mantenen relacions de simbiosi amb les arrels dels pins (micoriza); altres són paràsits dels arbres debilitats, com l’alzinoi (a la il·lustració de dalt a la dreta), o s’aprofiten de les restes orgàniques, com el xampinyó (a la il·lustració del costat). Cap d’aquests fongs no necessita la llum.
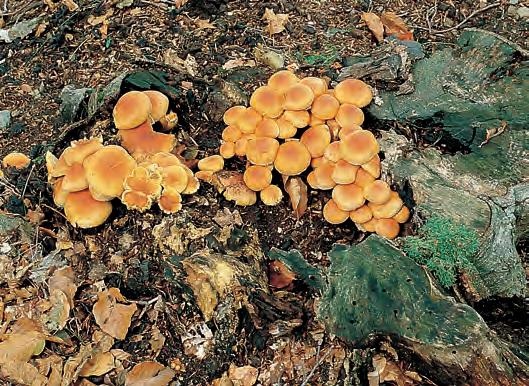
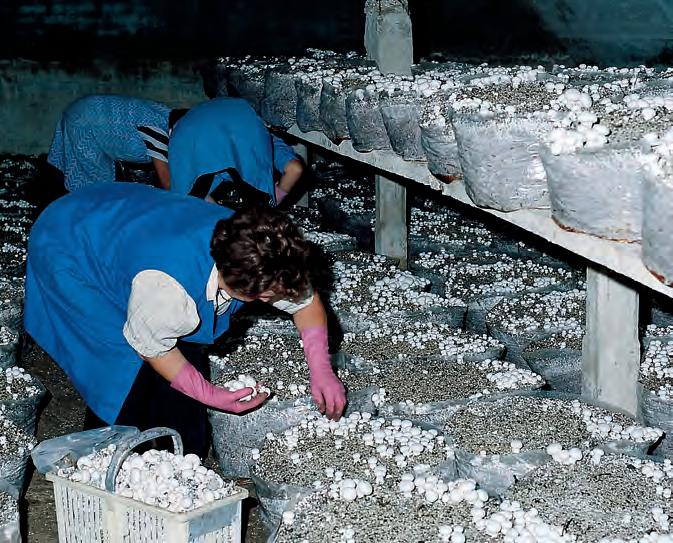
Fixem-nos ara en les condicions de creixement d’un altre fong que prenem com a model: el fong de la floridura del pa. Per poder créixer i desenvolupar-se, aquesta floridura necessita viure sobre matèria orgànica (el pa) amb una certa humitat.
A més de la humitat, hi ha altres factors que influeixen en el creixement dels fongs. El quadre següent recull els resultats d’un experiment en què es va cultivar floridura de pa sobre llesques de pa mantingudes durant una setmana en diferents condicions d’humitat, de temperatura i de claror.
Creixement de la floridura del pa segons les condicions ambientals
Condicions
Resultats
Pa moll, ben il·luminat i a 20 °C. La floridura envaeix la llesca de pa. Pa moll, a les fosques i a 20 °C. La floridura envaeix la llesca de pa. Pa moll, a les fosques i a 5 °C. La floridura no creix.
Pa sec, ben il·luminat i a 20 °C. La floridura no creix.
Com ja hem dit, tots els fongs són heteròtrofs. Ara bé, segons quina mena de matèria orgànica utilitzen, alguns són sapròfits i d’altres, paràsits. Entre els primers, alguns viuen en simbiosi, com ara els que conjuntament amb una alga formen els líquens.
Molts fongs sapròfits s’alimenten de restes de matèria orgànica morta, per exemple tots els fongs que s’alimenten de la fusta dels troncs i de les arrels dels arbres i que reconeixem sovint pels seus barrets arrapats als troncs o a les rabasses mortes.
També són sapròfites moltes floridures, entre les quals les provocades pels micromicets Penicillium, productors de la penicil·lina, que pel fet d’alimentar-se de matèria orgànica creixen sobre substrats molt diversos:pa, fruita, formatge, etc. Els paràsits, en canvi, són aquells fongs que viuen dins d’organismes vius o a sobre seu i que s’alimenten directament de matèria orgànica viva. Els fongs paràsits dels vegetals causen importants malalties als conreus. És el cas dels carbons, dels míldius, de les banyes dels cereals i dels rovells. Altres fongs són paràsits dels animals o de l’ésser humà.
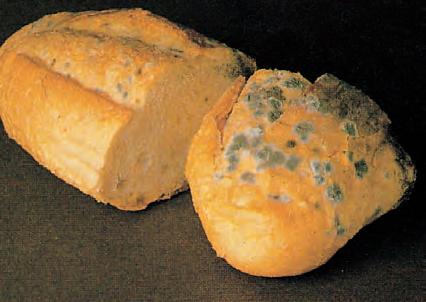
Aquesta floridura creix sobre el pa (matèria orgànica).
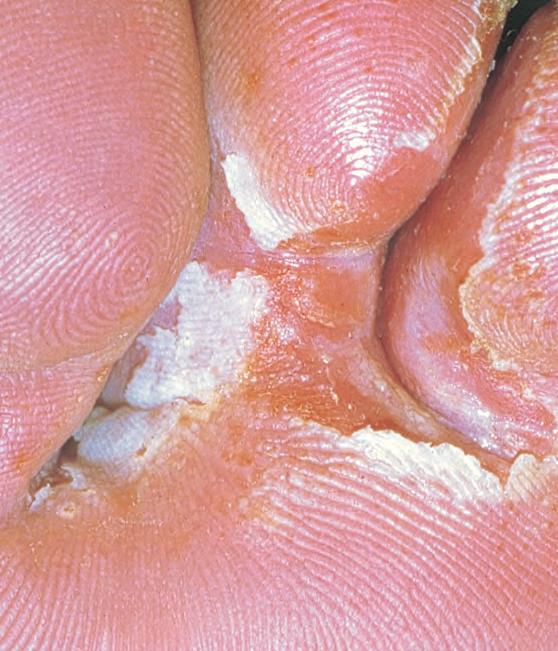
Els fongs paràsits, com en el cas del peu d’atleta, s’alimenten de matèria orgànica viva.
Els fongs sapròfits són molt importants a la natura, perquè, alhora que s’alimenten, eliminen moltes restes orgàniques (fusta podrida, plantes i animals morts…) que d’altra manera s’anirien acumulant. Es diu que són organismes descomponedors
En aquesta funció també col·laboren molts bacteris sapròfits que, igual que els fongs, s’alimenten de matèria orgànica morta. De fet, fongs i bacteris sovint estan junts, tot i que els fongs predominen en els ambients àcids i els bacteris prosperen millor en un medi alcalí.
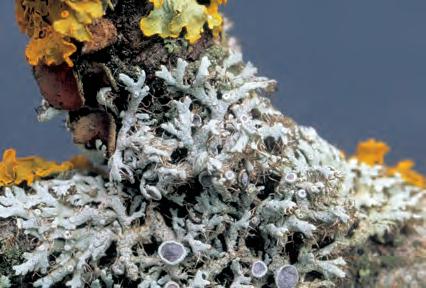
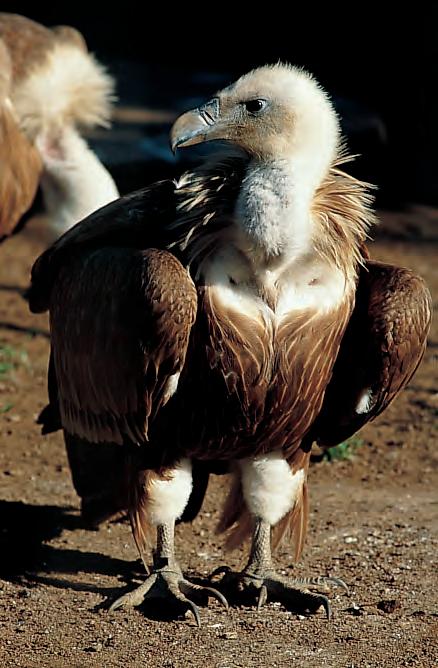
Els animals mengen, és a dir, prenen matèria orgànica. Per això es diu que la nutrició dels animals és heteròtrofa, perquè no produeixen la seva matèria orgànica, sinó que han de prendre la matèria produïda per altres organismes. El seu aliment procedeix sempre d’altres éssers vius.
Els animals que mengen vegetals, com ara la vaca, que menja herba, o l’esquirol, que menja pinyons, s’anomenen herbívors o fitòfags (del grec phyton, que significa ‘planta’, i phagein, que vol dir ‘alimentar-se’). Els que mengen animals, per exemple el gat, que menja rates, o la truita de riu, que menja mosquits i cuquetes de riera, s’anomenen carnívors o zoòfags (del grec zoon, que significa ‘animal’). També hi ha animals, com ara l’ésser humà o l’ós, que mengen una mica de tot; és a dir, la seva alimentació es compon en part de vegetals i en part d’animals. Per això s’anomenen omnívors (del llatí omnis, que vol dir ‘tot’).
Fins i tot hi ha animals que s’alimenten d’altres animals en procés més o menys avançat de descomposició: són els carronyers o necròfags (del grec nekros, que signfica ‘mort’), com ara el voltor o l’escarabat enterrador. D’altres, per exemple l’escarabat piloter, s’alimenten d’excrements i es denominen copròfags (del grec kopros, que vol dir ‘fem’).
També hi ha animals que són paràsits i s’alimenten de l’animal sobre el qual, o dins el qual, viuen. Aquest és el cas de la puça i la tènia o solitària, paràsits extern i intern, respectivament, de l’ésser humà.
Tots els éssers vius usen i transformen l’energia per poder portar a terme les seves activitats.
Les plantes, els animals i molts microorganismes tenen un procediment comú d’obtenir energia: la respiració.
La respiració és com una combustió controlada, que té lloc a l’interior de les cèl·lules, en què es «cremen» (degraden) molècules de matèria orgànica i es combinen amb oxigen. Com a conseqüència de la respiració, s’obté energia i es desprèn diòxid de carboni i vapor d’aigua. La reacció es pot escriure així:
matèria orgànica + oxigen = diòxid de carboni + aigua + energia
La respiració és una reacció molt semblant a una combustió, per exemple, la del carbó o la gasolina. L’energia que se n’obté, però, no és en forma de calor.
Per respirar, els organismes terrestres usen l’oxigen atmosfèric; els aquàtics, el dissolt a l’aigua. El vapor d’aigua i el diòxid de carboni van a parar al medi on viuen.
Sovint la respiració va acompanyada, en els animals, d’alguns moviments que faciliten aquest intercanvi de gasos. Aquests moviments han estat identificats com a símptoma de vida, però de fet la respiració no sempre implica moviment. Les plantes o els fongs també respiren, però sense que es produeixi cap moviment.
Plantes, animals, algues i fongs respiren, mentre que no tots els bacteris ho fan. I és que hi ha bacteris, molt primitius, que viuen sense oxigen, perquè obtenen l’energia d’altres degradacions parcials de la matèria orgànica. Aquests organismes s’anomenen anaerobis. Fins i tot alguns bacteris anaerobis, com ara el microbi del tètan, no toleren l’oxigen i es moren quan hi entren en contacte.
D’entre els aliments de què disposen, els animals escullen d’acord amb les seves preferències alimentàries. En alguns casos són molt estrictes: per exemple, l’ós panda només menja tronxos de bambú; el coala, fulles d’eucaliptus, i el jaumet del pèsol (un petit escarabat), llavors de pesolera. Altres animals tenen una alimentació molt més variada, com en el cas de la guineu, la ja esmentada truita de riu o el gaig.
En els estudis d’ecologia, l’alimentació d’un animal es representa sovint per mitjà d’un diagrama circular que permet interpretar el seu règim d’alimentació i la importància relativa de cada aliment: en el diagrama, la superfície que ocupa cada tipus d’aliment menjat representa el percentatge en l’alimentació de l’animal.
Sovint les preferències alimentàries s’han d’adaptar a les disponibilitats. En conseqüència, molts animals canvien d’alimentació amb el pas de les estacions, com en el cas de la guineu, que a l’hivern i a la primavera s’alimenta especialment de petits mamífers, mentre que a l’estiu i a la tardor menja nombrosos fruits; o el de l’isard, que a l’estiu menja preferentment l’herba dels prats i a l’hivern s’alimenta de fulles de pi.
De fet, els règims alimentaris de molts animals són força estrictes i dins de cada règim (herbívor, carnívor…) n’hi ha de diferents tipus. Per exemple, l’abella de la mel, el jaumet del pèsol i el corc de la fusta són herbívors; no obstant això, l’abella és nectarívora, ja que menja nèctar, el jaumet del pèsol és granívor, perquè menja llavors, i el corc de la fusta, que s’alimenta de fusta, és xilòfag (del grec xylon, que significa ‘fusta’). Així mateix, l’oreneta i l’àguila pescadora són carnívores, tot i que la primera és insectívora i la segona, piscívora
Aquest és el gràfic alimentari de la guineu al llarg de l’any.
Quina interpretació fas sobre el règim alimentari i les preferències alimentàries d’aquest animal?
Com expliques les variacions que s’hi observen?
3.3. El nínxol ecològic
Precipitació anual (mm)
Els diferents arbres dels Pirineus Orientals tenen cadascun el seu nínxol ecològic, si bé no són absolutament excloents.
El nínxol ecològic és la posició que, des d’un punt de vista alimentari, ocupa una espècie determinada en l’ecosistema. Aquest concepte fa referència a la «funció» que té l’espècie en l’ecosistema, és a dir, a allò que menja, al seu ritme d’activitat diària o al seu ritme d’activitat estacional en l’espai físic que aquesta espècie ocupa en l’ecosistema. En el cas dels vegetals, el nínxol fa referència a les condicions concretes en què prospera. Habitualment, en un ecosistema madur tots els nínxols ecològics d’una àrea geogràfica concreta estan ocupats únicament per una espècie. S’anomenen espècies vicariants aquelles espècies que, sent properes des d’un punt de vista anatòmic i d’origen evolutiu i vivint en indrets similars, ocupen el mateix nínxol ecològic en zones geogràfiques diferents. Quan, pel motiu que sigui, dues o més espècies estrictament vicariants entren en contacte (passen a viure en el mateix ecosistema), tard o d’hora una, i només una, s’hi acaba imposant.
La relació que s’estableix entre organismes que pugnen per l’aprofitament d’un mateix recurs, ja sigui l’aliment o un indret adequat per arrelar i créixer, pren el nom de competència. Ara bé, sovint els individus d’espècies diferents eviten la competència entre ells, bé perquè s’alimenten de manera diferent, bé perquè exploten recursos diversos. Aleshores la seva relació és neutra o inexistent. Les relacions entre les espècies d’un ecosistema poden ser molt variades i s’estudien sota el nom genèric de relacionsinterespecífiques En algunes relacions interespecífiques, com és ara el cas de la predació, una de les dues espècies surt afavorida respecte a l’altra, però hi ha altres relacions en les quals són totes dues espècies les que surten beneficiades de la interacció o, si més no, cap de les dues no en surt perjudicada. Aquest seria el cas de tres situacions diferents: el comensalisme, el mutualisme i la simbiosi, els límits entre les quals a vegades són difícils d’establir.
4.1. Predació
Els depredadors, o predadors, són aquells organismes que cacen i s’alimenten d’altres: les preses. En són exemples el linx o el gat salvatge, que s’alimenten de llebres i conills; el lleó, que captura gaseles i zebres; l’escurçó, que caça ratolins i talps… Una espècie caça i l’altra és caçada. Les relacions entre depredadors i preses són molt evidents: si hi ha poques preses, la població de depredadors se’n ressent; si aquests darrers cacen molt, disminuiran les preses (se’n diu, precisament, l’estratègia de Tom i Jerry). Alguns dels primers estudis predador-presa van ser realitzats per Vito Volterra i Alfred J. Lotka en la dècada de 1920. Alguns d’aquests estudis tenen importants aplicacions pràctiques, per exemple per a les pesqueries.
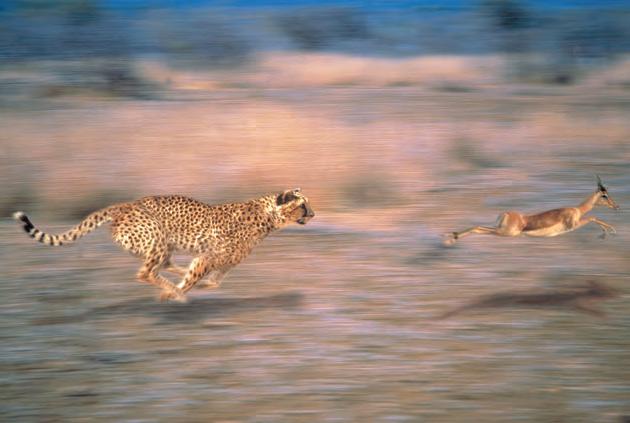
Els animals han de menjar, ja que, a diferència dels vegetals, no poden fabricar-se la matèria orgànica. Alguns mengen plantes, i d’altres, com ara els depredadors, cacen.
Un organisme –el comensal– s’alimenta de les restes de menjar de l’altre, així com de les mudes, les escates i altres productes del seu cos. Mentre que el primer se’n beneficia clarament, el segon –denominat patró– pot sortir-ne lleugerament beneficiat o no treure’n cap benefici, però tampoc cap perjudici. El comensalisme és el cas de la relació existent entre els mamífers o els ocells i els àcars o els insectes que viuen als seus caus i nius. De fet, aquests últims s’alimenten de les restes dels primers (mudes, plomes, escates, deixalles de menjar…). En els formiguers i termiters també hi viuen una gran quantitat d’espècies comensals, com ara molts escarabats, encara que també s’hi allotgen paràsits i depredadors.
Quan les relacions suposen un cert benefici mutu per a ambdós associats, parlem de mutualisme. Un cas ben notori és el dels organismes netejadors. L’esplugabous, per exemple, és una au que es posa sobre el llom dels grans herbívors (o dels cocodrils) i s’alimenta dels seus paràsits. El benefici per al quadrúpede rau en el comportament de l’ocell, el qual «l’avisa» dels perills que s’apropen. És similar el cas dels «peixos netejadors», que separen restes de menjar, paràsits i teixits morts d’animals més grossos, generalment altres peixos de diferent espècie.
Es poden interpretar com a mutualisme alguns comportaments apresos, com la conducta de les gavines, que s’han acostumat, a la recerca d’aliment, a seguir els tractors per menjar els cucs i les larves que l’activitat d’altres individus d’una espècie diferent –en aquest cas el pagès que llaura– posen al descobert.
Un altre cas ben estudiat de mutualisme és el dels pugons amb les formigues. Els primers s’alimenten xuclant la saba elaborada de les plantes i expulsen per l’anus l’excés de líquid ingerit, que és dolç gràcies als glúcids que conté. Algunes formigues s’alimenten activament d’aquests sucs fins al punt de transportar els seus «ramats» de pugons amunt i avall de la planta i de defensar-los d’aquells animals, com ara les marietes, que en són depredadors.
La cel·lulosa és una substància abundant en la fusta i altres productes d’origen vegetal que, tanmateix, la majoria d’organismes no poden digerir. Els que, com els tèrmits de la fotografia, se’n poden alimentar solen tenir a l’interior de l’intestí microbis que sí que la poden digerir.
La simbiosi consisteix en l’acoblament íntim entre individus de dues espècies diferents –els simbionts– que n’obtenen un benefici mutu molt apreciable. És, per tant, una relació propera al mutualisme que pressuposa, però, una integració més íntima que moltes vegades implica l’acoblament del funcionament dels dos individus, fins al punt que sovint els dos organismes viuen interpenetrats, l’un dins de l’altre. Té, en aquest aspecte, certes similituds amb el parasitisme, del qual es pot considerar una evolució. La simbiosi té una extraordinària importància econòmica i també és molt important en el conjunt de la biosfera. En considerarem les formes següents:
– Digestió de la cel·lulosa. La cel·lulosa –un glúcid polisacàrid–és la substància orgànica més abundant a la biosfera, ja sigui en forma d’herba i fulles tendres o de fusta, però resulta molt difícil de pair. La majoria dels animals (incloent-hi l’ésser humà) són incapaços de fer-ho. Tanmateix, molts organismes (des dels remugadors i els herbívors en general fins als tèrmits) es nodreixen principalment de cel·lulosa perquè tenen a l’interior del seu intestí uns microorganismes que són capaços de digerir aquest polisacàrid. D’aquesta relació, els microbis n’obtenen un avantatge obvi: l’aixopluc.
– Simbiosi d’organismes aquàtics amb algues. Alguns organismes aquàtics, com ara els coralls i les madrèpores, que viuen a la zona il·luminada del mar, acullen algues microscòpiques (dites zooxantel·les) a l’interior dels seus teixits. Mentre l’animal es beneficia dels productes de la fotosíntesi de les algues, aquestes en canvi disposen d’un medi resguardat i segur per viure-hi.
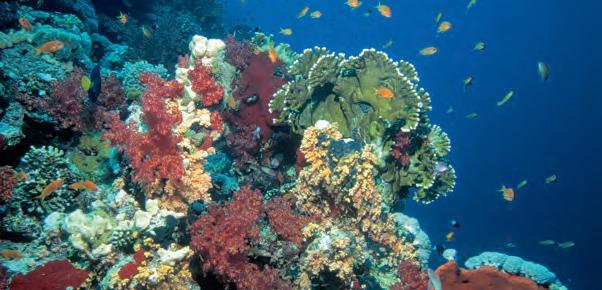
– Líquens. És la relació de simbiosi d’una alga i d’un fong. Realment un liquen és, doncs, un organisme doble, format per un fong –heteròtrof– que acull les cèl·lules d’una alga –fotosintètica– que viuen en el seu interior. El benefici per al fong consisteix a poder disposar dels productes de la fotosíntesi de l’alga, mentre per a l’alga constitueix un benefici la protecció i la disponibilitat de productes, com ara l’aigua, que el fong capta amb molta més facilitat.
– Micorizes. Les arrels de moltes plantes estableixen relacions subterrànies amb el miceli (conjunt d’hifes o filaments) dels fongs. D’aquesta manera la planta veu augmentat el seu sistema de captació d’aigua i d’altres substàncies procedents del sòl. El fong, per la seva banda, pot obtenir de la planta els productes de la fotosíntesi. Entre les plantes, les orquídies estableixen sempre micorizes amb altres vegetals.
Encara que no els faci falta la llum per viure, els coralls viuen en aigües il·luminades perquè les algues que acullen en simbiosi en el seu interior puguin fer la fotosíntesi.
– Simbiosi de plantes lleguminoses amb bacteris fixadors de nitrogen. Els vegetals del grup de les lleguminoses (favera, mongetera, pesolera…) acostumen a associar-se amb uns bacteris –entre els quals hi ha els rizobis– que passen a viure a l’interior de les seves arrels i hi causen uns engruiximents o nòduls radicals específics. Aquests bacteris tenen la particularitat que són capaços de fixar el nitrogen atmosfèric (que impregna el sòl), cosa que no poden fer les plantes (i per aquest motiu és necessari en agricultura l’addició d’adobs nitrogenats). De la simbiosi, el rizobi n’obté aixopluc, estabilitat i alguns productes de la fotosíntesi. En canvi, per a la lleguminosa la simbiosi és una font de compostos nitrogenats. Des de l’època romana la particularitat de les plantes lleguminoses per enriquir el sòl era coneguda de forma empírica. En l’agricultura tradicional, el pagès obtenia d’aquesta manera una part del limitat adob dels seus conreus. Per aquest motiu era freqüent la pràctica de la rotació de cultius, amb l’intercalació –a més del guaret– cada dos, tres o quatre anys d’un cultiu de lleguminoses que aportaven nitrogen al sòl.
Sovint les relacions micoríziques són molt específiques, com en el cas de les que s’estableixen entre el roure o l’alzina (i algun altre arbre de fulla caduca) i el rossinyol.
Anant de flor en flor, l’abella afavoreix la pol·linització encreuada.
Els vegetals epífits són molt abundants a les selves tropicals i subtropicals.
4.5. Forèsia
És una relació de benefici exclusivament unilateral que consisteix en el fet que una espècie és transportada passivament per una altra (patró). En aquest cas, el benefici és de desplaçament. A vegades el transportador també n’obté algun profit. És el cas del tauró, per exemple, que transporta la rèmora, la qual s’alimenta amb les restes del menjar que aquell deixa i el neteja de paràsits. També és el cas dels insectes que transporten el pol·len de flor en flor i obtenen, amb aquest fet, la «recompensa» del nèctar. En tots aquests exemples hi ha, de fet, una certa aproximació al mutualisme.
Es dóna quan un organisme viu sobre un altre. Aquest és el cas de moltes orquídies i el de moltes altres plantes tropicals de la família de les bromeliàcies, que són epífites; és a dir, plantes que no viuen sobre el terra, sinó que ho fan sobre els arbres i aprofiten tal vegada el minúscul replà de la superfície d’una branca o d’una enforcadura. Poc freqüents en els ambients terrestres mediterranis, els vegetals epífits són molt comuns a les selves i als boscos humits.
Consisteix en la utilització de restes de cadàvers, d’excrements o d’esquelets d’altres espècies, però no pas com a aliment, sinó amb una finalitat diferent. És el cas de les cuques de riera (insectes tricòpters) que viuen, en fase de larva, protegides a l’interior d’un estoig construït amb pedretes i restes orgàniques (vegetals, closques buides de petits cargols, etc.). Uns altres exemples de tanatocresi són el del bernat o cranc ermità, que viu a l’interior de la closca buida d’un cargol, i –en un altre ordre de coses–el del pinsà arborícola de les illes Galápagos, que utilitza una pua de figuera de moro per extreure els insectes de l’interior de les escletxes de l’escorça dels arbres, dels quals s’alimenta.
En el parasitisme una espècie s’alimenta a costa d’una altra. La primera, que obté benefici de la relació, és el paràsit, mentre que la segona, que en pateix perjudici, és l’hoste o hospedador. Alguns paràsits són externs (ectoparàsits), com ara les puces i els polls, mentre que altres són interns (endoparàsits), atès que –com la tènia o solitària–viuen a l’interior de l’hoste. El parasitisme és un fenomen molt freqüent. Es calcula que al voltant del 10% dels animals d’una regió determinada ho són.
Quan, com a conseqüència de la presència del paràsit, l’hoste emmalalteix greument, es parla de paràsits patògens. En el fons, la mort de l’hoste significa, de fet, un fracàs també per al paràsit (que es veu privat del seu sistema de vida), per la qual cosa moltes espècies de paràsits no arriben a produir-la. És per aquesta raó que es pot considerar que molts microorganismes patògens es troben, en el seu procés d’adaptació a la vida parasitària, en les etapes inicials d’aquest procés.
Dues de les característiques més significatives dels paràsits són la gran capacitat reproductora i la regressió anatòmica i funcional. La vida del paràsit, especialment la dels endoparàsits, implica una gran dificultat per trobar l’hàbitat adequat, la qual cosa és compensada, en els seus cicles biològics, per una gran capacitat de reproducció. Són animals que ponen molts ous –milions, fins i tot– per tal d’assegurar que algun descendent trobarà la manera d’introduir-se en un nou hoste i podrà perpetuar, així, la vida de l’espècie.
Per contra, una vegada superat el greu inconvenient de trobar l’hoste adequat, la vida del paràsit sol ser molt fàcil, sense gaires perills i amb un doll de menjar abundant, com passa a la solitària que viu a l’intestí de l’ésser humà. Això explica que molts paràsits tinguin els òrgans dels sentits i l’aparell digestiu molt reduïts i simplificats.
A vegades els paràsits formen cadenes. És a dir, existeixen paràsits de paràsits, fenomen que rep el nom d’hiperparasitisme, freqüent, per exemple, en determinats grups de vespes (himenòpters icneumònids) que ponen els ous –mitjançant un llarg agulló que tenen les femelles– a l’interior del cos de les larves d’altres insectes. Una vegada allí, la larva de la vespa rosega els teixits de l’hoste. Doncs bé, hi ha algunes espècies de vespes que ponen els ous en larves d’altres vespes que estan vivint paràsites en l’interior d’un primer hoste. Es coneixen cadenes d’hiperparàsits amb cinc baules: l’insecte hoste i quatre espècies diferents de vespes que es parasiten en cadena.
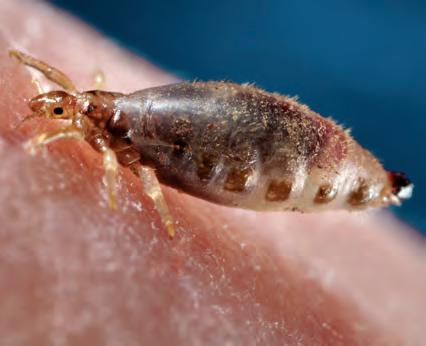
Els polls són ectoparàsits hematòfags, és a dir, s’alimenten de la sang dels seus hostes.
Les femelles dels insectes icneumònids tenen un llarg fibló que no serveix per picar, sinó per pondre els ous. Els permet fer-ho fins i tot en el cos de les larves que hi ha a l’interior de la fusta.
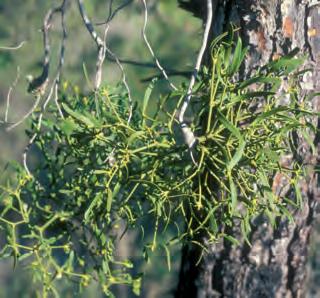
El vesc és una planta paràsita que viu damunt les branques d’alguns arbres, com els pins i els roures.
El parasistisme no és exclusiu dels animals o dels microbis. També hi ha plantes paràsites, com ara el vesc, que parasita arbres com els pins i els roures. El vesc és en realitat un hemiparàsit, perquè té clorofil·la i, de fet, fabrica per fotosíntesi una part dels seus nodriments. Paràsites del tot ho són, tanmateix, moltes altres plantes com ara la cuscuta i els diferents tipus de frares (de la família de les aràcies, de les orobancàcies, etc.), que parasiten una diversitat d’espècies cultivades o silvestres (heura, romaní…). També entre els fongs el parasitisme és molt freqüent.
Alguns microorganismes del tipus dels bacteris i dels fongs presenten la capacitat d’eliminar els competidors segregant una substància, l’antibiòtic, que mata els altres organismes que viuen en els voltants o n’inhibeix el desenvolupament. El cas més notori, el primer que es va conèixer, és el de la floridura verda del pa Penicillium notatum. Aquesta floridura produeix la penicil·lina, la qual, quan el Penicillium creix sobre un possible aliment (una crosta de pa, una taronja, etc.), n’elimina altres possibles comensals. El descobriment de la penicil·lina per part d’Alexander Fleming, l’any 1928, va ser cabdal en la història de la medicina moderna, ja que les propietats dels antibiòtics han resultat ser decisives per combatre les malalties de transmissió bacteriana.
Les espines dels vegetals són un mecanisme defensiu.
En el transcurs de l’evolució, els éssers vius han desenvolupat estratègies, passives o actives, per tal d’enganyar les seves preses, fugir o evitar els depredadors. Sovint aquestes estratègies han esdevingut adaptacions anatòmiques del cos de plantes i animals.
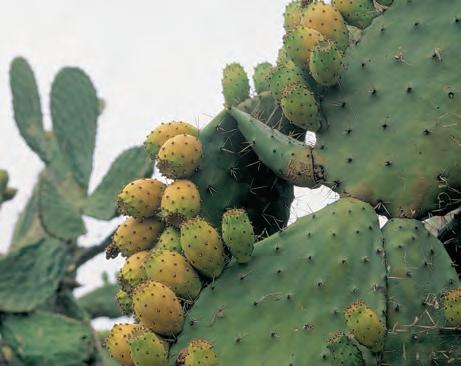
Elements defensius mecànics
Els agullons (rosers, esbarzers) i les espines freqüents en moltes plantes (argelagues, cactus, palmeres…) tenen una explicació clara. Així mateix, de punxes n’hi ha també en abundància entre els animals (porc espí, eriçons de mar i de terra…). També tenen caràcter defensiu les closques i armadures externes, que a vegades veuen augmentada la seva eficàcia per la capacitat que presenta l’animal de cargolar-se en bola (és el cas, per exemple, dels petits crustacis coneguts com a porquets de Sant Antoni). Una estràtegia similar presenten els armadillos o tatús d’Amèrica del Sud, que tenen el cos recobert d’unes plaques en forma de bandes, o les tortugues, que tenen una closca dorsal i un plastró ventral.
Autotomia reflexa
Alguns animals, com ara les sargantanes, quan són objecte d’un atac tenen la capacitat de desprendre’s d’una part del cos que després regeneren (una pota, una antena, la cua…). Aquesta capacitat de regeneració és freqüent en molts altres organismes.
És evident, així mateix, el caràcter defensiu d’armes com ara les banyes o les pinces dels crancs. Si el propi cos resulta massa mengívol, els organismes fins i tot poden revestir-se d’una defensa aliena, com fa el bernat ermità, que s’introdueix en una closca buida de mol·lusc. Altres vegades la defensa no és sinó una «cortina de fum», com fan els pops i els calamars, per exemple, que en veure’s molestats aboquen a l’exterior el producte de la glàndula de la tinta.
A mig camí entre la defensa química i la mecànica és digne d’esment el cas d’un bon nombre d’erugues de lepidòpters, les quals estan revestides de pèls que amb freqüència són urticants i, a vegades, molt tòxics.
Sistemes defensius químics
Ho són, per exemple, els alcaloides que acumulen moltes plantes (i entre els quals hi ha moltes de les drogues conegudes). Es tracta de substàncies nitrogenades que són tòxiques per a molts herbívors (però no per a tots) i que, per tant, constitueixen una excel·lent defensa. De totes maneres, hi ha animals (per exemple les larves d’insectes) que toleren alguns d’aquests alcaloides, així que poden alimentar-se de les plantes que en fabriquen. Aquest fenomen s’interpreta en termes de coevolució entre els uns i els altres, ja que és fàcil intuirhi un doble avantatge.
Uns altres mecanismes químics de defensa són les secrecions tòxiques o pestilents,com ara les de les genetes, les mofetes i les musaranyes.
Les holotúries, o cogombres de mar, recorren a una altra estratègia igualment expeditiva i eficaç: l’expulsió –en sentir-se atacades– de les vísceres i altres substàncies repel·lents.
També són una bona defensa les descàrregues elèctriques dels torpedes i altres peixos elèctrics, o les reaccions de fugida i d’agrupació que porten a terme molts organismes. En una mola de peixos o en un vol d’ocells, per exemple, l’agrupació minimitza el risc i ajuda a desorientar l’atacant.
Cripsi i homocromia
Sovint la millor defensa consisteix a passar desapercebut. Molts animals adopten una estratègia d’immobilitat reflexa quan se senten amenaçats. «Fer-se el mort» els evita ensurts perquè sovint el depredador s’ha de fiar dels moviments de la presa per detectar-la. Tanmateix, no tots els caçadors tenen tan mala vista! I, en conseqüència, molts animals presenten colors, formes i aspectes molt poc vistosos, tan poc vistosos que l’animal sovint es confon fàcilment amb el fons, amb el medi, en un fenomen que s’anomena cripsi. Quan la cripsi consisteix en una situació de camuflatge com a conseqüència del fet que l’animal imita el color del medi, es parla d’homocromia.N’hi ha molts exemples: els insectes fulla i els cavalls de faves (insectes bastó) són uns dels més coneguts. Però una bona forma de camuflar-se pot ser també no tenir cap color. Aquesta és l’estratègia dels peixos transparents. Així mateix, la coloració típi-
Els cavalls de faves o insectes bastó tenen un aspecte i un color que imita l’entorn i els serveix per camuflar-se. Aquests insectes constitueixen, doncs, un exemple de cripsi.
La coloració dels tomàquets de mar i de les papallones zigenes també és aposemàtica.
ca de tants i tants peixos, fosca en el dors i blanquinosa en el ventre, és igualment eficaç per passar desapercebuts. Altres peixos, com ara el llenguado, presenten la capacitat de modificar la coloració d’una forma prou ràpida, variant la distribució cel·lular dels cromatòfors que contenen els diferents pigments de la pell. És un mecanisme similar al que porten a terme els camaleons.
No sempre, però, la cripsi és un camuflatge adreçat a defensar-se de l’atac. Passar desapercebut mentre s’està a l’aguait per sorprendre la presa és l’estratègia d’animals tan coneguts com ara els pregadéus o les aranyes de les flors.
Coloració disruptiva
Altres vegades la millor coloració defensiva és una combinació aparentment cridanera però que en un entorn bigarrat permet camuflar-se. Les taques, les franges, freqüents en molts animals, tenen sovint aquest sentit: ajuden l’organisme a camuflar-se entre les herbes, sota les ombres del brancatge o sobre el fons. D’aquesta coloració que desdibuixa la silueta, en un sentit de camuflatge, se’n diu coloració disruptiva. Sovint aquelles franges travessen, en el seu recorregut pel cos, la posició ocupada per l’ull del mamífer o del peix i aleshores es comprèn encara millor la seva funció distorsionadora de la silueta i de la forma del cos de l’animal. Molts organismes, especialment peixos, insectes i crustacis (com ara les galeres), presenten també ocels o falsos ulls. Quan aquests falsos ulls se situen prop de la cua, la seva funció es pot interpretar com una manera de cridar l’atenció cap a parts menys vitals del cos (lluny dels autèntics ulls) de manera que, en cas d’un atac, el portador de falsos ulls té, davant la confusió del depredador, uns instants d’avantatge.
Aposematisme
Una forma molt airosa de defensa –quan realment s’està protegit– és l’advertència. Molts animals protegits per verins i secrecions repel·lents o repugnants obtenen més avantatge si presenten una coloració advertidora que crida l’atenció i adverteix del perill que amaguen. Aquesta coloració advertidora s’anomena també coloració aposemàtica o aposematisme
Cal, però, tenir en compte que les adaptacions evolutives s’han d’interpretar sempre en funció de les unitats genètiques, és a dir, de les poblacions i les espècies, i no pas dels individus singulars. Si l’espècie està protegida per la toxicitat o el verí, la millor defensa no és pas el camuflatge, sinó cridar l’atenció. Per mitjà de la coloració, els depredadors, després d’unes quantes experiències inicials desagradables, aprenen ràpidament a no molestar aquells organismes nocius. Per a aquests, el preu a pagar és escàs, ja que n’hi ha prou amb unes quantes baixes individuals per evitar atacs successius a la totalitat de la població.
Les coloracions advertidores es basen en colors vius i llampants que es veuen de ben lluny. Com a exemples podem posar el vermell dels tomàquets de mar, les combinacions de groc i negre de les vespes, armades d’agullons, i les de vermell i negre de les boniques papallones zigenes, les quals, si bé destaquen molt sobre les flors de muntanya, estan protegides ni més ni menys que per substàncies molt properes al cianur.
Mimetisme
En aquest panorama d’enganys i advertiments, el mimetisme representa un mecanisme defensiu encara més refinat per mitjà del qual una espècie desprotegida que no té cap toxicitat, ni una repugnància especial ni cap arma vulnerant o defensiva pot esdevenir ben protegida si és capaç d’imitar amb fidelitat l’aspecte d’algun altre organisme realment tòxic o perillós i provist d’una coloració aposemàtica. Es tracta, doncs, d’una altra estratègia d’engany. Si l’aspecte és tan similar, el depredador no podrà distingir entre l’espècie realment tòxica (o repugnant) i la farsant.
Són exemples coneguts de mimetisme les serps inofensives que, a Amèrica, imiten amb fidelitat l’aspecte de la mortal serp corall. És cert que si en veiem l’una al costat de l’altra en un terrari o en un museu podríem distingir-les per l’aspecte, però en plena natura la similitud és més que suficient per fer desistir fins i tot els depredadors més agosarats. Entre les papallones és cèlebre el cas de les diverses espècies de Papilio africanes que imiten –sobretot en el cas de les femelles– la coloració de papallones danaides dels gèneres Amauris i Danaus, defensades pel seu sabor repugnant.
Altres vegades l’avantatge del mimetisme rau en el cooperativisme, és a dir, diverses espècies realment protegides comparteixen un mateix aspecte. Com que comparteixen un mateix «uniforme» advertidor, el «peatge» que ha de pagar cada espècie en forma de baixes fins que els possibles depredadors inexperts no acaben d’aprendre que aquells organismes no han de ser molestats és més baix que si cada espècie obrés pel seu compte.
A dalt: Papilio dardanus mascle (esquerra) i Papilio dardanus femella (dreta) del tipus normal.
Al mig: Amauris crawshay (esquerra) i femella de Papilio dardanus (dreta) que la mimetitza allí on coincideixen. A baix: Amauris echeria (esquerra) i femella de Papilio dardanus (dreta) que la mimetitza allí on coincideixen.
2.1. Rellegeix, a la pàgina 40, l’observació que Jan Baptista van Helmont va fer per intentar trobar una resposta a la pregunta d’on treuen aliment les plantes. Què hem de pensar de la interpretació que va fer dels resultats?
a)Justifica si tenia raó o no.
b)Saps de cap fet o resultat que et permeti pensar de què «s’alimenten» les plantes? Enumera’ls.
c)Quins experiments faries per sortir de dubtes?
d)El salze, ha produït matèria orgànica nova o l’ha obtinguda d’un altre lloc? El salze ha augmentat més de 70 kg, han sortit del recipient de terra?
2.2. Respon a les preguntes següents, relacionades amb el gràfic referent al creixement dels vegetals (tomaquera) i el diòxid de carboni (pàgina 41):
a)Quina és la matèria seca de les plantes quan es comença l’observació?
b)Quina és la matèria seca d’aquestes plantes al cap de 30 dies de creixement en el cas de les plantes cultivades en una atmosfera amb 0,1% de CO2 i de les plantes cultivades en una atmosfera amb 0,03% de CO2?
c)Quin és, per tant, l’augment experimentat per les plantes cultivades en una atmosfera amb 0,1% de CO2 i per les plantes cultivades en una atmosfera amb 0,03% de CO2?
d)En conseqüència, quina conclusió es pot treure d’aquest experiment? És a dir, què passa amb l’augment de pes de les plantes de tomaquera amb relació a la quantitat de CO2 present en l’atmosfera?
e)Sovint els agricultors enriqueixen l’atmosfera de l’interior dels hivernacles de cultiu amb més diòxid de carboni. Quina finalitat et sembla que busquen?
2.3. De l’estudi de l’alimentació de l’aligot comú es desprèn que és formada en un 25% per talps i ratolins, en un 5% per ocells, en un 20% per sargantanes i altres vertebrats petits, en un 30% per escarabats i altres insectes i en un 20% per carronya. Dibuixa el diagrama alimentari de l’aligot i digues quin tipus de règim alimentari té.
2.4. Defineix els termes anaerobi, respiració, fong i floridura.
2.5. Oberva el quadre de la pàgina 44. La floridura del pa creix bé sobre pa humit i a temperatura ambient (ho pots veure en el resultat de la primera fila o experiment control). Ara, respon a les preguntes que hi ha a la pàgina següent:
a)La floridura del pa és indiferent a la llum o no ho és?
b)Quins experiments has hagut de comparar per obtenir aquesta conclusió?
c)La floridura del pa és indiferent a la temperatura o no ho és?
d)Quins experiments has hagut de comparar per obtenir aquesta conclusió?
e)La floridura del pa és indiferent a la humitat o no ho és?
f)Quins experiments has hagut de comparar per obtenir aquesta conclusió?
g)En resum, en quines condicions creix millor la floridura del pa? Quin tipus d’alimentació té?
2.6. Copia el quadre de sota, relatiu a les necessitats nutritives de les plantes verdes i dels fongs. Indica amb un signe + o amb un signe –si aquestes necessitats nutritives els són indispensables o no.
Necessitats nutritives Plantes verdes Fongs
Llum
Sals minerals
Diòxid de carboni
Matèria orgànica
2.7. Respon a les preguntes següents:
a)Les fruites tenen sabor dolç, ja que tenen sucre. D’on ha sortit aquest sucre? La planta, l’ha agafat de terra? Raona la resposta.
b)Els animals mengen aliments. I les plantes, de què viuen?
c)Els animals es desplacen per buscar menjar. Les plantes no. Per què no els cal desplaçar-se?
d)Els fongs necessiten viure sobre éssers vius o sobre restes d’éssers vius. I les plantes? Explica-ho.
2.8. Mira el dibuix del costat, que representa l’horari d’estiu de la cabra salvatge en un dia normal. Quin tipus de nutrició i quin règim alimentari presenta aquesta espècie?
(Adaptat deB. FISCHESSER: Richesses de la nature.)
Altitud 3000m Dorm a recer de les roques. Puja tot brostejant.
h
h
Remuga i reposa en un indret clar i assolellat. Baixa tot pasturant.
21 h 4 h
Altitud 2500 m
Remuga i després dorm a recer de les roques.
El funcionament de la natura és cíclic: les plantes produeixen la matèria orgànica que necessiten, els herbívors es mengen les plantes i aquests són menjats pels carnívors… Per completar la roda fa falta, però, un nivell tròfic que, si bé no és gaire aparent, és importantíssim: el dels descomponedors.
Després d’estudiar com s’alimenten els diferents tipus d’éssers vius, és evident que estan interrelacionats, ja que els uns es mengen els altres. De fet, les plantes verdes constitueixen un primer esglaó o nivell tròfic, perquè mitjançant la fotosíntesi transformen la matèria inorgànica en la seva pròpia matèria orgànica. D’aquests productors, en depenen –directament o indirectament– la resta d’organismes. Començant pels consumidors, és a dir, els que mengen matèria orgànica, entre aquests hi ha, en primer lloc, els animals herbívors o consumidors primaris. Damunt seu es troben, en un tercer nivell tròfic, els consumidors secundaris, és a dir, els carnívors que s’alimenten dels herbívors. I encara hi pot haver més nivells, com ara els anomenats «supercarnívors» o consumidors terciaris, que s’alimenten dels consumidors secundaris.
Però el funcionament de la natura és cíclic. Tot s’aprofita i torna a començar, de manera que aquest esquema no seria complet si oblidéssim un altre nivell tròfic sovint no gaire aparent, però importantíssim: el dels descomponedors. Com que aquests organismes són fongs i bacteris sapròfits que viuen sobretot de les restes de matèria orgànica (fulles caigudes, cadàvers, fusta podrida, etc.), mentre treuen l’energia i l’aliment necessari d’aquelles restes contribueixen a mineralitzar-les, és a dir, a fer-les inorgàniques perquè els productors les utilitzin una altra vegada.
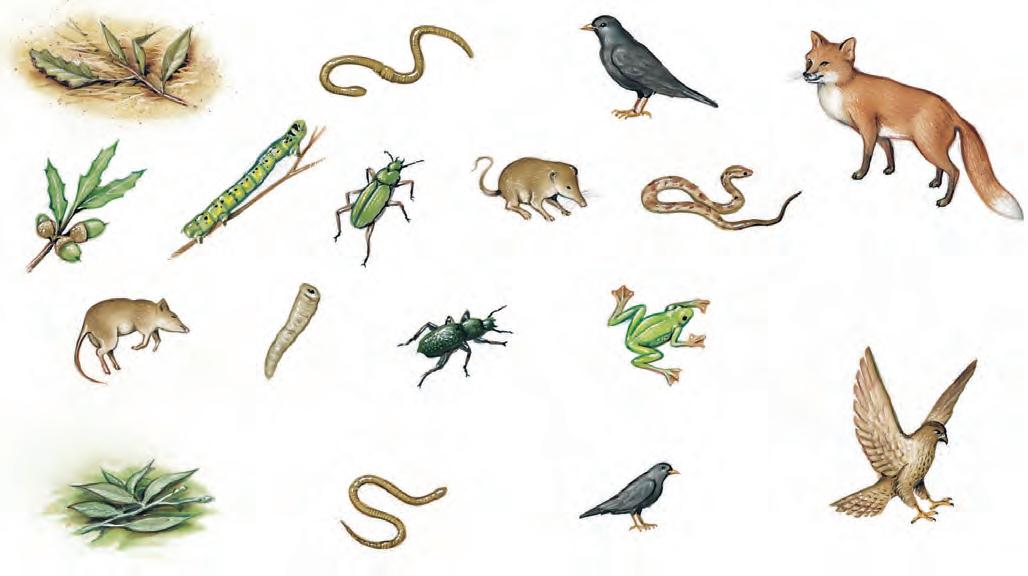
Tal com acabem de veure, els organismes se situen en els ecosistemes en diferents nivells tròfics encadenats els uns als altres. Formen cadenes tròfiques en què cada element és menjat pel següent. Com hem estudiat anteriorment, però, sovint un animal no s’alimenta exclusivament d’un únic tipus d’organisme. A més, una espècie pot ser menjada per diversos depredadors. Per aquest motiu, més que de cadenes tròfiques, es tracta de xarxes tròfiques
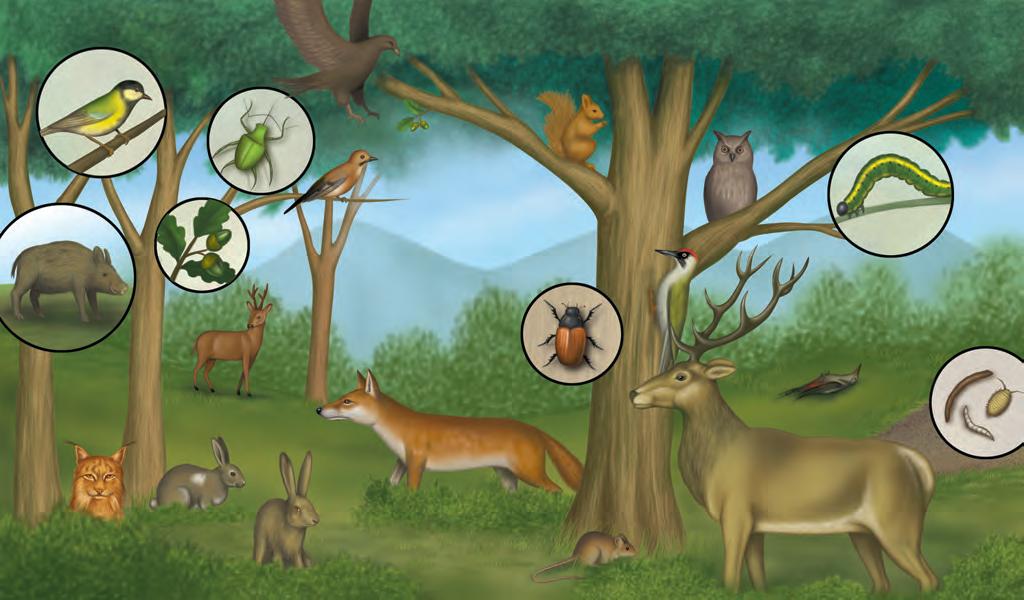
Mallerenga
Mallerenga
Senglar
Senglar Cabirol
Conill
Linx
Glans
Aligot
Aligot
Bequerut
Gaig
Esquirol Glans
Llebre
Esquirol
Cérvol
Ratolí
Els nivells tròfics inferiors sostenen els superiors. De fet, el rendiment que cada organisme obté del seu aliment és limitat: una part no és digerida i s’expulsa en forma d’excrements, una altra part és consumida i utilitzada per fer moure la maquinària bioquímica del propi organisme… Només una part del que es menja i es digereix es transforma en material viu nou, en cos del consumidor. Dit d’una altra manera, cal que hi hagi moltes herbes per alimentar un conill, molts conills per alimentar un linx…
Tot això s’expressa gràficament dient que els successius nivells tròfics d’un ecosistema constitueixen una piràmide, en què la superfície (o volum) de cada pis és més reduïda que la de l’inferior. Per regla general, en el medi aquàtic, en què els rendiments són més elevats, cada nivell representa només el 10% de l’anterior (n’aprofita només el 10%).
Les fletxes indiquen algunes de les relacions tròfiques en l’ecosistema que forma el bosc mediterrani. Fes un esquema complet de la xarxa tròfica que formen els organismes d’aquesta comunitat.
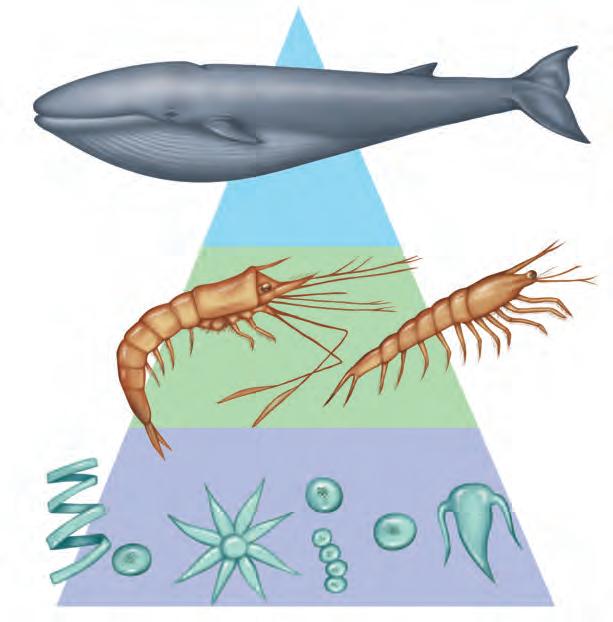
En el medi terrestre els rendiments són, de mitjana, molt inferiors.
Les piràmides més senzilles de construir són les piràmides de nombres: els nivells són proporcionals, en cada cas, al nombre d’individus. Aquestes piràmides són, però, enganyoses, perquè no tenen en compte la mida dels organismes. Per aquest motiu, s’acostuma a utilitzar les denominades piràmides de biomassa, que es representen d’acord amb la massa dels organismes –biomassa– de cada nivell, és a dir, calculant quina és la massa total dels productors, dels herbívors, etc. Les piràmides d’energia, que representen l’energia que hi ha en cada nivell, són també molt clares, ja que mai no resulten invertides.
Amb tot, el principal defecte de les piràmides és que no mostren els descomponedors (en la pràctica és molt difícil avaluar-ne el nombre i la massa).
La forma de les piràmides depèn de la quantitat d’energia que passa d’un nivell al següent, és a dir, de l’eficiència dels organismes de cada nivell per capturar l’energia del nivell inferior i convertir-la en energia emmagatzemada en el seu propi cos.
Si ens fixem en la piràmide d’un bosc observem, per exemple, que els carnívors de primer ordre són més eficients que els herbívors, cosa que es deu al fet que les matèries vegetals són difícils de pair (la cel·lulosa és difícil de digerir) i produeixen molts residus indigeribles. En canvi, la matèria animal, la «carn», és més fàcil de digerir i té més valor nutritiu.
Si ara comparem, però, la piràmide del bosc amb la del litoral marí, resulta com si els herbívors del litoral marí fossin més eficients que els del bosc. Per què? La raó, en part, cal buscar-la en el fet que les plantes aquàtiques no tenen un «esquelet» tan robust com les terrestres (no en necessiten), de manera que el seu cos és més «tendre» i més fàcil de pair. Els herbívors marins s’alimenten, doncs, de materials més digeribles i produeixen menys excrements.
Piràmide de nombres d’un prat
Piràmide d’energia d’una badia
Pèrdues d’energia
Consumidors terciaris
Consumidors secundaris
Consumidors primaris
Productors
herbívors 750 000 6Vegetació 000 000
Producció en g/m2/any
Sembla també com si els carnívors de primer ordre del litoral fossin més eficients que els del bosc, la qual cosa s’explica en part pel fet que els carnívors del bosc gasten moltes energies en desplaçaments per trobar les preses, mentre que molts dels carnívors del litoral sovint es mouen lentament i esperen més aviat que l’aliment se’ls posi a l’abast. Com que gasten menys energia, els en queden unes reserves més grans. D’altra banda, el fet que els organismes litorals siguin més eficients provoca que les cadenes i les piràmides siguin més llargues: als nivells superiors hi arriba més energia i tenen, per tant, més nivells tròfics.
S’entén per producció d’un ecosistema la biomassa generada per unitat de temps, mesurada, per exemple, en mg/cm2/dia, en g/m2/any o en kg/ha/any. La producció de biomassa en els vegetals constitueix la denominada producció primària. De fet, és possible distingir la producció primària bruta (PB), o biomassa sintetitzada pels productors, de la producció primària neta (PN), o diferència entre la biomassa de la producció primària bruta i la que fan servir els productors en la respiració.
El concepte de producció primària té una gran importància pràctica, perquè permet avaluar, per exemple, el rendiment d’una collita o d’una explotació forestal. Com que a vegades el càlcul pot ser molt complicat (com es mesura la biomassa de l’herba d’un prat?), es fan servir estimacions indirectes; per exemple, el nombre de caps de bestiar que pot alimentar un prat. La producció primària neta és, de mitjana, d’uns 100 gC/cm2/any (gC = grams de carboni) en molts dels
Les piràmides tròfiques expressen gràficament la idea que cada nivell tròfic és força més reduït que l’anterior. Són útils per tenir una idea global de la dinàmica d’un ecosistema, però tenen el defecte de no mostrar tots els nivells tròfics. Quin nivell tròfic no és representat en aquestes piràmides?
No tot l’aliment menjat és assimilat, ja que una part és excretada. De la part assimilada, una fracció és emprada en activitats diverses, com ara la respiració, i només la part romanent servirà, un cop emmagatzemada, per formar massa corporal pròpia, en aquest cas de l’eruga.
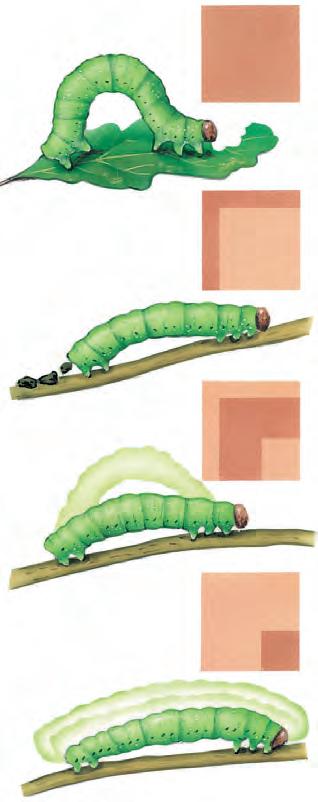
Les il·lustracions d’aquesta pàgina mostren el flux d’energia en l’ecosistema d’un prat, amb la part de l’energia solar que els diferents nivells tròfics (plantes, ratolins i mosteles) converteixen en biomassa, la part que utilitzen en la respiració i la part que es perd.
ecosistemes aquàtics litorals, i només d’un 30% d’aquesta mitjana en els terrestres. S’anomena producció secundària la massa produïda pels consumidors (augment de la biomassa).
La productivitat és el quocient que relaciona la producció amb la biomassa (productivitat = producció/biomassa). La producció és una estimació bruta o absoluta, mentre que la productivitat mesura l’eficiència del sistema, el rèdit aconseguit en funció del capital (biomassa) en joc. En la majoria d’ecosistemes terrestres gairebé no acostuma a sobrepassar l’1%. En canvi, en alguns ecosistemes marins pot ser ocasionalment molt elevada; és el cas del fitoplàncton, que pot arribar a tenir una productivitat del 100% gràcies al fet que a vegades es reprodueix molt ràpidament. Tant és així que, si en representéssim la piràmide de biomassa, aquesta tindria un aspecte «rar», amb el nivell del zooplàcton més voluminós que el del fitoplàcton, precisament perquè aquest és de reproducció tan ràpida.
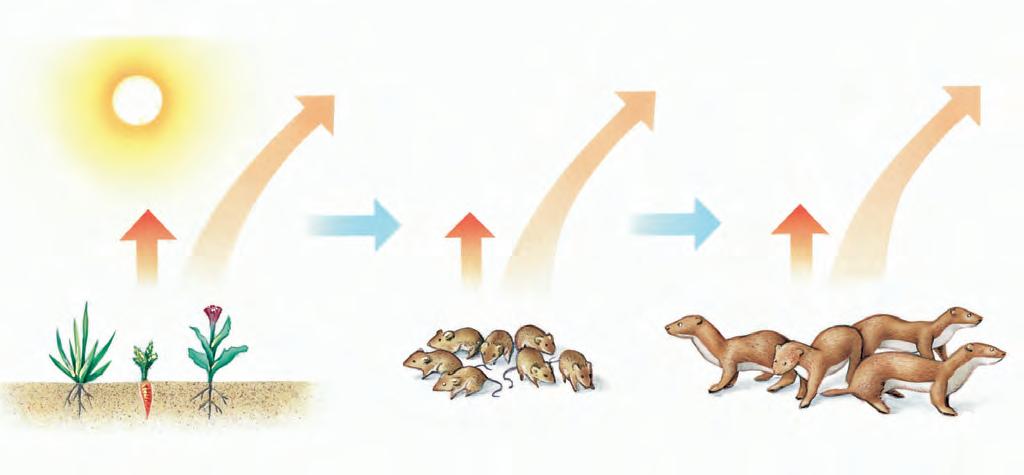
Energia que arriba (197 · 108 kJ) per hectàrea
Productors
Energia perduda
Biomassa (valor energètic: 66 · 106 kJ)
Plantes
Respiració dels ratolins
Consumidors de primer ordre
Biomassa (valor energètic: 21,6 · 103 kJ)
Ratolins
Respiració de les mosteles
Consumidors de segon ordre
Biomassa (valor energètic: 1032 kJ)
Mosteles
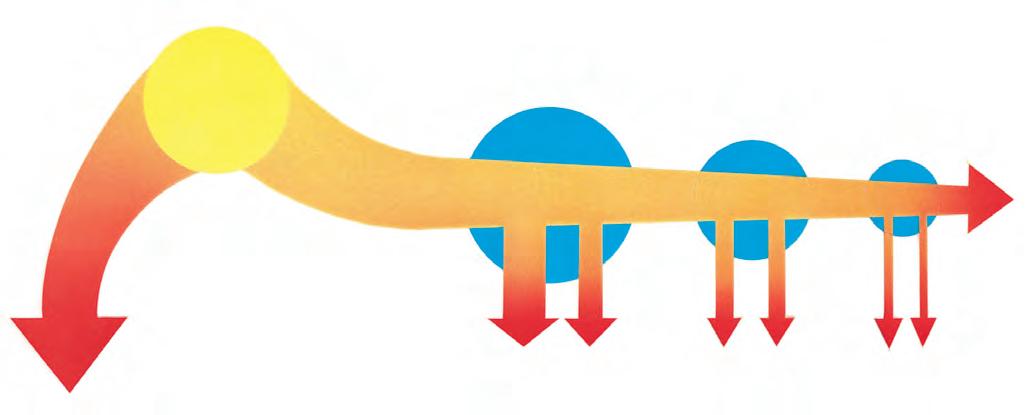
Energia solar
Energia solar no absorbida per les plantes
Biomassa dels productors
Biomassa dels herbívors
Biomassa dels carnívors
Energia solar absorbida per les plantes, però no utilitzada per a la fotosíntesi
N. U.
Respiració de les plantes
N. U.
N. U. = Energia no utilitzada
Respiració dels herbívors Respiració dels carnívors
N. U.
2.9. Estableix, per mitjà d’un esquema amb fletxes, la xarxa tròfica d’un ecosistema integrat per aquests organismes, dels quals s’indiquen, entre parèntesis, els hàbits alimentaris: cucs anèl·lids (algues), crancs (cucs anèl·lids), estrelles de mar (mol·luscos bivalves, cucs anèl·lids), gavines (crancs, peixos), mol·luscos bivalves (fitoplàncton), peixos (zooplàncton), sípia (peixos), zooplàncton (fitoplàncton). Indica a quin nivell tròfic pertany cadascun d’aquests organismes.
2.10. Esmenta i comenta tres exemples diferents de simbiosi. Explica quina relació hi ha entre simbiosi i parasitisme. És possible que a partir de la primera situació s’arribi a la segona? Raona la resposta.
2.11. Si bé els productors no necessiten matèria orgànica, s’acostuma a dir que com més matèria orgànica hi ha en un medi aquàtic, més gran és la quantitat d’organismes productors. Com expliques aquest fet?
2.12. Respon a les preguntes següents:
a) Quins són els nivells tròfics d’un ecosistema? En quin sentit circula el flux d’energia?
b) Per què no tota l’energia absorbida pels vegetals passa als herbívors o consumidors primaris?
c) Per què un ecosistema no pot tenir un nombre il·limitat de nivells tròfics?
2.13. Herba Llagosta Granota Colobra Falcó Considera la cadena tròfica anterior i respon a les preguntes:
a) A quin nivell tròfic pertany cadascun dels organismes?
b) Quins organismes hi tanquen el cicle de la matèria?
c) Suposant que l’eficàcia de la transferència d’energia d’un nivell tròfic al següent fos en tots els casos del 10%, calcula quanta herba seria necessària per mantenir un falcó d’1 kg de pes.
2.14. Defineix els termes biomassa, producció, productivitat, nínxol ecològic i hàbitat. Posa’n exemples.
2.15. Observa els valors de la productivitat (expressats en kg/ha/any) dels tres ecosistemes del quadre següent, i respon a les preguntes:
Sabana Llac alpí Devesa
vist al microscopi òptic.
Eficiència (fracció en biomassa assimilada en forma de massa pròpia) dels diferents nivells tròfics a l’ecosistema marí.
Peixos menjadors de zooplàncton (1 g)
Zooplàncton carnívor (10 g)
Zooplàncton herbívor (100 g)
a) Representa els valors de la productivitat en forma de piràmide. Potser et seran útils mesures logarítmiques. Per què?
b) Per què és diferent l’energia solar disponible en cadascun dels casos?
c) Compara les tres piràmides. Quines conclusions en treus?
2.16. Respon a les preguntes següents:
a) Per què en tot ecosistema hi ha descomponedors?
b) Per què un ecosistema necessita una aportació contínua d’energia?
c) Ordena els termes següents en un esquema i relaciona’ls per mitjà de fletxes: carnívors, descomponedors, herbívors, llum, plantes, respiració.
2.17. L’esquema de peu de pàgina mostra el flux d’energia (expressada en kcal/m2/dia) en un ecosistema teòric.
a) Compara els valors de la producció primària neta amb els de la producció secundària neta. Justifica’n les diferències.
b) Justifica, amb l’ajuda de la informació de l’esquema, el fet que el nombre de nivells tròfics de qualsevol sistema sigui limitat.
c) Què caldria millorar per disposar d’energia per a un altre nivell tròfic?
d) Digues si és casual o no, i per què, el fet que els ecosistemes tropicals tinguin, en general, una diversitat alta.
e) Hi ha alguna cosa en les xifres de l’esquema que fa pensar que es tracta d’un esquema més teòric que no pas real. Per què?
Pèrdua d’energia de la biomassa vegetal no utilitzada pels herbívors: fulles, restes vegetals 11 Energia ingerida pels herbívors 29
Energia no assimilada pels herbívors: excrements 9
Producció secundària bruta dels herbívors 20
Producció secundària neta dels herbívors 4
Respiració
Respiració dels herbívors 16
2.18. Fixa’t en aquestes dades, que són les de la taula de la pàgina 40, i resol les qüestions següents:
Producció de matèria vegetal
1a mesura2a mesura
Camp d’alfals Es van sembrar Es van recollir 15 kg/ha a la 9 t/ha a l’estiu. primavera.
Bosc de roures 200 t/ha. Es van recollir
219 t/ha al cap d’un any.
a) Redacta un informe en què desenvolupis tota la informació continguda en la taula anterior, la qual compara la producció de matèria vegetal en dos ecosistemes diferents.
b) Calcula els augments de producció de matèria vegetal en el camp d’alfals i en el bosc de roures. Expressa el resultat en tones per hectàrea i per any (t/ha/any).
c) Expressa l’augment calculat de l’activitat anterior en tant per cent.
d) D’on han sortit les 19 tones guanyades pel bosc de roures? Quin fenomen biològic n’és la causa?
2.19. Indica, amb relació a la xarxa tròfica de la il·lustració d’aquesta pàgina, els punts següents:
a) Els organismes productors.
b) Els consumidors secundaris.
c) Les possibles relacions de mutualisme, comensalisme, tanatocresi i forèsia.
d) Els mecanismes de defensa mecànics.
e) Els mecanismes de defensa químics.
f) Els exemples d’aposematisme.
g) Els exemples de cripsi.
2.20. Llegeix el text de sota i contesta a les preguntes que hi ha a continuació:
Els [ocells] rapinyaires són carnívors i sovint maten per viure. Això ens inclina, instintivament, a rebutjar-los. Hom ha odiat i temut tradicionalment els rapinyaires, de manera ben injusta. No fan res que nosaltres mateixos no fem i, a més, les seves víctimes solen ésser animals que ens perjudiquen directament (serps, ratolins, etcètera) o carronya que convé d’eliminar. En qualsevol cas, la bondat o la maldat no són conceptes que tinguin sentit en biologia: som nosaltres qui reputem de bo allò que ens plau i de dolent allò que ens desplau. Actualment s’ha après a estimar i respectar els rapinyaires i són molts els països –entre els quals hi ha el nostre– la legislació dels quals prohibeix formalment de matar-los.
RAMON FOLCH, Comprendre la natura
a) Quins són els ocells rapinyaires? Posa’n exemples.
b) Quin lloc ocupen els ocells rapinyaires en les cadenes i piràmides tròfiques?
c) Amb relació a la pregunta anterior, digues si en cas de contaminació ambiental els ocells rapinyaires en resultarien gaire afectats.
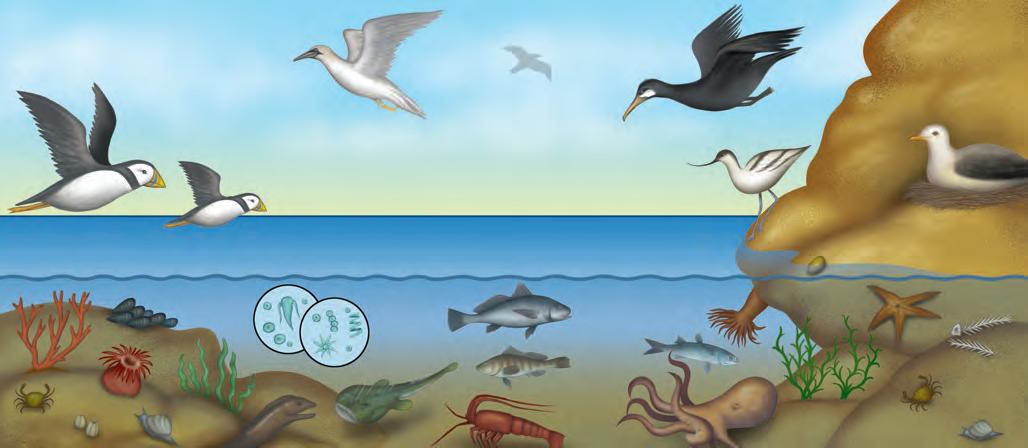
Llíssera
Llíssera
Actínia Gavina
Estrella de mar
Actínia Estrella de mar Algues
Cargol
Cargol
Cadàvers i restes d’animals Pagellida
Cadàvers i restes d’animals Pagellida
d)De quina manera ens beneficien els ocells rapinyaires?
e)Quins són els principals motius a favor de la protecció dels ocells rapinyaires? Què pots fer per protegir-los?
2.21. S’ha mesurat la quantitat d’oxigen (O2) i de diòxid de carboni (CO2) present en l’aigua d’una bassa a diferents hores del dia. El gràfic de sota expressa els resultats que s’han aconseguit. Fes-ne la interpretació i contesta a les preguntes que hi ha a continuació:
Variació dels nivells d’oxigen i de diòxid de carboni
a) Quan comença a augmentar la quantitat d’oxigen?
b) Quan deixa d’augmentar la quantitat d’oxigen?
c) Per què la quantitat d’oxigen augmenta o deixa d’augmentar en els moments esmentats anteriorment?
d) Què passa amb la quantitat de diòxid de carboni present a l’aigua de la bassa mentre la quantitat d’oxigen augmenta?
e) Quines són les variacions que es produeixen en la quantitat de diòxid de carboni?
f) A què es deuen aquestes variacions?
2.22. Hem alimentat un cargol amb herbes durant les 30 setmanes que dura el seu creixement, des que surt de l’ou. Durant aquest temps hem pres nota del pes de l’aliment que li hem donat, dels excrements que ha fet i també del pes del mateix cargol. Contesta a les preguntes que hi ha a continuació, tenint en
compte que els resultats (expressats en mg de matèria seca) són els següents:
– massa dels aliments 621 – massa dels excrements 121 – massa corporal del cargol (augment)53
a) Quina és la massa de menjar que el cargol no ha incorporat?
b) Com es diuen els organismes que es poden alimentar d’allò que el cargol no ha incorporat? Quins et sembla que són aquests organismes?
c) Quina és la massa de la matèria que el cargol ha consumit per a la seva respiració?
d)Redacta un comentari breu sobre el resultat d’aquests experiments utilitzant les paraules biomassa, producció, productivitat i respiració
e) Si els ocells que s’alimenten de cargols aprofitessin el menjar amb idèntica eficiència que el cargol aprofita l’herba, quants cargols serien necessaris per «fer» un d’aquests ocells de 50 g de pes?
2.23. L’esquema següent mostra, de manera simplificada, les relacions alimentàries en una roureda.
a) A quin nivell tròfic correspon cada organisme?
b)Suposant que al bosc del costat hi hagués un incendi i que molts ocells insectívors fugissin del foc i s’instal·lessin en aquesta roureda, per què és probable que el nombre de mussols disminuís? Per què és probable que ho fes també el nombre d’erugues i de papallones?
c)Qui pot sortir més beneficiat d’aquesta arribada d’ocells insectívors: la musaranya o el gripau? Per què?
d)Suposant que una malaltia eliminés gairebé totes les musaranyes, quins organismes es veurien afectats? Per què?
2.24. El diagrama següent mostra algunes relacions tròfiques en un estany d’aigua dolça (les fletxes indiquen la direcció del flux de l’energia). L’aplicació d’un insecticida provoca la disminució dràstica de les poblacions d’insectes.
a)Quines són les cadenes més llargues? Escriu-les.
b)Enumera tots els organismes productors representats.
c)Enumera tot els consumidors primaris i secundaris representats.
d)En quins nivells tròfics hi ha les poblacions d’insectes de l’estany? Explica raonadament de quina manera l’aplicació de l’insecticida pot afectar la població de serps aquàtiques.
e)Les larves de mosquit també s’alimenten de bacteris i de matèria orgànica en partícules molt petites que hi ha a l’aigua. Justifica la importància de la població de larves de mosquit en el cicle de la matèria.
f)Què passarà si augmenten els lucis?
g)Només una petita fracció de l’energia transformada per les algues verdes és incorporada pels teixits del luci. Per què?
2.25. A l’estiu, a vegades apareixen al litoral català grans quantitats de meduses. A la il·lustració de sota hi ha representats alguns dels organismes que hi tenen una relació tròfica. Observa-la i respon a les preguntes següents:
a)Quin nivell tròfic correspon al requadre de l’interrogant i quins organismes el constitueixen? Enumera els altres nivells tròfics que hi ha representats en el dibuix.
b)No es coneix del tot quins factors determinen la dinàmica de les poblacions de meduses. Tot i això, a partir de la informació que hi ha en el dibuix, quines creus que poden ser les causes que determinen l’esmentada proliferació de meduses?
2.26. Per a cada un dels animals de la llista que tens a continuació, digues quin aliment consumeix preferentment, quin és el seu règim alimentari i a quina varietat pertany: martí pescador, tèrmit, zebra, gall fer, voltor, ós panda, esquirol, oreneta, balena, rossinyol, ós bru.
Fixa’t en l’exemple: Martí pescador: peixos; carnívor; piscívor.
2.27. La franja equatorial es caracteritza per una constància en les seves condicions climàtiques. Al llarg de tot l’any, la temperatura, la insolació i la humitat són elevades, i això fa possible el desenvolupament de les selves. En latituds mitjanes, en les quals el cicle estacional és molt important i els climes són temperats, predominen els boscos temperats.
a) Tenint en compte que el reciclatge de nutrients es deu fonamentalment a l’activitat dels microorganismes descomponedors, raona si el reciclatge serà més ràpid a la selva tropical o al bosc temperat.
b) En cadascun dels casos (selva o bosc temperat) justifica si els nutrients es trobaran, majoritàriament, al sòl o als arbres.
c) Els sòls tropicals (sòls laterítics, laterites) sovint són pobres en nutrients minerals. La vegetació els aprofita amb molta eficiència reciclant-los contínuament. Cerca informació i raona què succeeix amb la producció futura d’aquests sòls quan s’extreuen de la selva grans quantitats de fusta.
2.28. El gràfic de la pàgina 47 mostra els diferents nínxols ecològics dels arbres dels Pirineus Orientals. Explica’n detalladament el contingut per mitjà d’una redacció en què, a més del concepte de nínxol ecològic, et refereixis també a les condicions ambientals i als factors limitants. Contesta, a més, a les qüestions següents:
a) Tal com il·lustra el gràfic, per sobre dels 2500 m no hi ha arbres. Raona quin és el factor limitant en aquest cas.
b) Esbrina quins d’aquests arbres són perennifolis i quins són caducifolis i relaciona aquesta diferència amb els seus nínxols.
c) Com són les fulles dels pins? Quina relació hi ha entre aquest fet i els nínxols que ocupen?
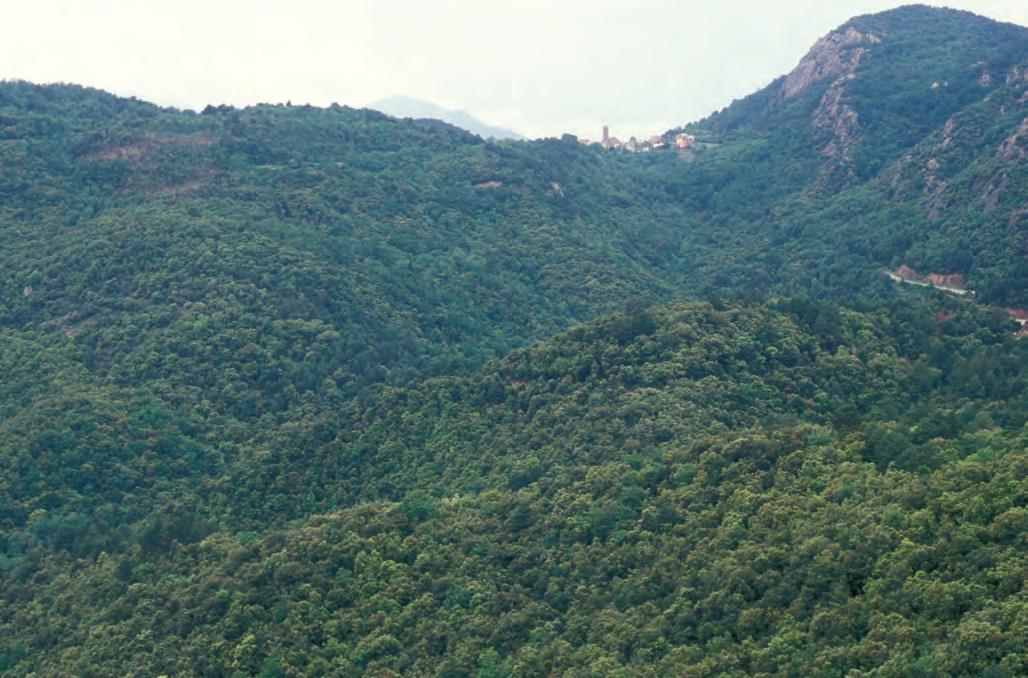
1. Observa aquests diagrames alimentaris i contesta a les preguntes següents:
a)Quin és el règim alimentari de la merla? I el de la griva?
b)Si bé la merla i la griva mengen els mateixos aliments, es pot dir que tenen el mateix tipus d’alimentació? Per què?
c)Quin percentatge representen els animals en l’alimentació de la geneta? I en la de la gralla?
d)Quin percentatge representen els vegetals en l’alimentació de la geneta? I en la de la gralla?
e)Quin és el règim alimentari de la geneta? I el de la gralla?
2. En la taula d’aquí sota es presenta la composició percentual de l’aire inspirat (l’aire atmosfèric) i de l’aire expirat (l’expulsat per la boca o pel nas després de la respiració). Estudia aquestes dades, copia
la taula i escriu a la columna de la dreta si aquests gasos participen o no en la respiració i si, com a conseqüència de la respiració, n’ha augmentat o disminuït la quantitat.
3. Llegeix les afirmacions següents, les quals són ben certes:
– Durant la fotosíntesi, les plantes consumeixen diòxid de carboni i produeixen (desprenen) oxigen.
– Les plantes només fan la fotosíntesi si tenen claror, és a dir, de dia.
– Les plantes, igual com fan els animals, respiren. En la respiració, les plantes consumeixen oxigen i produeixen (desprenen) diòxid de carboni.
– Les plantes respiren sense parar, de dia i de nit.
– La quantitat d’oxigen que desprèn una planta mentre fa la fotosíntesi és més elevada que la quantitat d’oxigen que consumeix en la respiració.
– La quantitat de diòxid de carboni que consumeix una planta mentre fa la fotosíntesi és més elevada que la quantitat de diòxid de carboni que desprèn en la respiració.
Ara, contesta, amb la màxima precisió possible, a les preguntes que hi ha a continuació:
a) Les plantes, durant el dia, consumeixen oxigen? Consumeixen diòxid de carboni? Purifiquen l’atmosfera, és a dir, l’enriqueixen amb oxigen? Enrareixen l’atmosfera, o sigui, l’enriqueixen amb diòxid de carboni?
b) Contesta aquestes mateixes qüestions, però ara suposant que els fenòmens plantejats passin de nit.
c) Contesta les mateixes qüestions que abans, però suposant que els fenòmens plantejats passin sempre, tant de dia com de nit.
d)No tots els organismes, però, respiren. Fes les consultes bibliogràfiques que et calguin i digues què significa el terme anaerobi i quins organismes ho són.
4. Llegeix el text següent i respon a les preguntes que hi ha a continuació:
En l’evolució dels ecosistemes ha aparegut, i s’ha desenvolupat, una xarxa d’interaccions i adaptacions que porten a una reducció efectiva del flux d’energia. En lloc d’augmentar la fluïdesa del flux d’energia i la producció, la tendència més seguida per la natura ha tingut, precisament, resultats oposats. Això resulta xocant, però n’hi ha prou de reflexionar sobre l’organització i el funcionament de les societats humanes per convèncer-se que les tendències mencionades són vàlides en la major part dels sistemes naturals.
La tendència a l’engany, a la desorientació i al retard va portar Cott a escriure: «Traduït en termes de trànsit de carreteres, podríem imaginar-nos un món en el qual els rètols de les carreteres assenyalarien direccions oposades a les dels noms indicats; en el qual hi hauria carreteres pintades, amb molt d’art, sobre parets, amb senyals de trànsit invitant a la col·lisió; en què hi hauria vehicles disfressats de tal manera que la seva part davantera semblaria la posterior; un món en el qual alguns vehicles distingibles com a automòbils de bombers o ambulàncies circularien amb ostentació i es pararien amb brusquedat i, de vegades, desapareixerien de la vista dels altres usuaris de la via pública; en el qual els senyals de pas prohibit barrarien carreteres viables, mentre que en altres indrets el paviment estaria soscavat per clots ben dissimulats i amb guàrdies dirigint el trànsit precisament cap a ells. Unes condicions d’aquesta mena no es podrien compaginar amb els objectius de fluïdesa i màxima seguretat viària.»
Cott diu que el codi de la natura no porta a la seguretat, sinó a la supervivència del més adequat. En termes ecològics, podríem afegir que la meta no és aconseguir el màxim de fluïdesa de trànsit, sinó el major retard possible de la circulació. Acumular vehicles i gastar poca benzina. D’aquesta manera no ens sembla tan paradoxal.
RAMON MARGALEF, Ecologia
a) Què vol dir que «en lloc d’augmentar la fluïdesa del flux d’energia i la producció, la tendència més seguida per la natura ha tingut, precisament, resultats oposats»?
b) Continuant l’analogia de Cott, quins organismes o situacions naturals es poden comparar amb rètols que assenyalen camins equivocats, vehicles disfressats, senyals de pas prohibit que barren carreteres ben transitables, clots ben dissimulats i guàrdies que dirigeixen el trànsit cap a ells?
c) Continuant amb la metàfora de la pregunta anterior, el fet d’acumular vehicles i gastar poca benzina, és compatible amb un trànsit fluid?
d) Argumenta si, continuant amb les analogies, la natura és més aviat comparable a l’art romànic, al gòtic o al barroc.
5. Observa amb atenció els ocells d’algun indret freqüentat per aquests (plaça, jardí, etc.). Identifica’ls amb l’ajut del professor i, mentre segueixes observant-los al llarg d’uns quants dies, descriu les seves interaccions amb relació a la conducta alimentària i la reproductora. Descriu-ne, usant el vocabulari que has après en aquesta unitat, els règims alimentaris i les relacions tròfiques i interespecífiques.
6. En el gràfic de la pàgina següent es representa el nombre de pells de llebre i de linx que els caçadors han venut a la Companyia de la Badia de Hudson des de l’any 1845 fins al 1935.
a) Per què el nombre de pells de linxs i de llebres és una bona estimació del nombre d’individus de les seves poblacions?
b) Per què hi ha aquestes oscil·lacions, tant de predadors com de preses?
c) Per què el nombre de llebres és generalment superior al de linxs?
d) Digues si els pics de població màxima de llebres vénen abans o després dels pics de població màxima de linxs. Explica per què s’esdevé així i no pas al revés.
e) A les zones on actualment els linxs han desaparegut, les poblacions de llebres segueixen presentant oscil·lacions. Quina mena d’explicació pot tenir aquest fet?
7. La il·lustració del costat mostra una part de la xarxa tròfica simplificada d’un litoral rocós mediterrani. Observa-la amb atenció i respon a les preguntes següents:
a) A quin nivell tròfic correspon cadascun dels organismes de l’esquema?
b) Suposa que una situació d’excés de pesca ha eliminat gairebé tots els crancs. Per què és probable que augmenti el nombre de barretets? Per què és probable que disminueixi el nombre de gavians?
c) Què passarà amb el nombre de cargols marins? Formula dues hipòtesis que expliquin aquests fets:
1) Que el nombre de cargols augmenta.
2) Que el nombre de cargols disminueix.
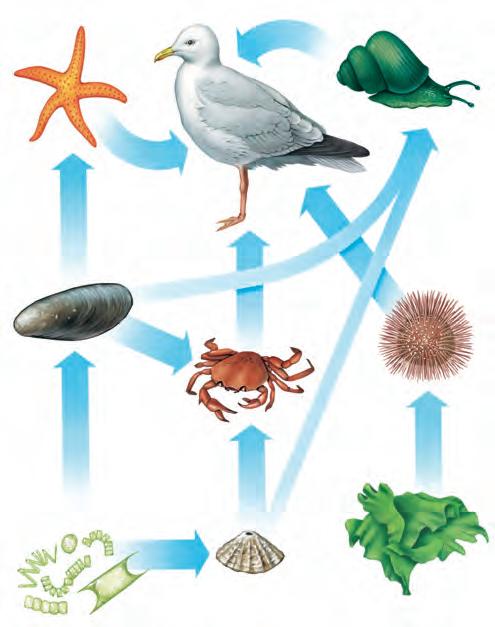
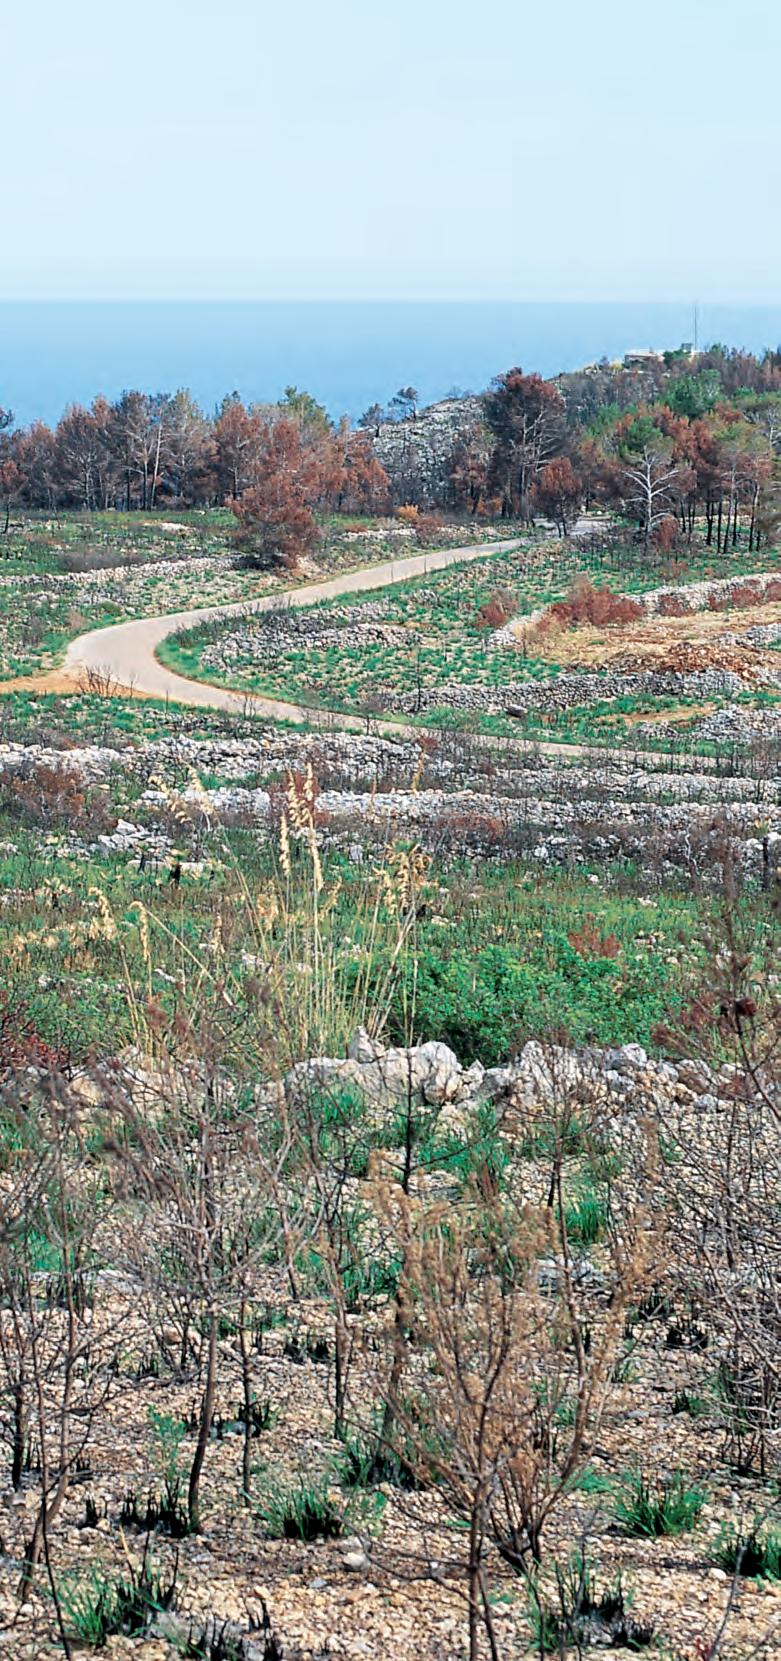
Esquema
1. La successió ecològica
2.El clímax
3.Biomes
4.Els cicles biogeoquímics
5.El flux d’energia
Els incendis forestals retrotreuen la vegetació fins a estadis empobrits i, com que deixen el sòl més exposat a l’erosió, en dificulten la recuperació.
Les unitats naturals o ecosistemes poden canviar al llarg del temps. Gairebé tothom ha contemplat alguna vegada un ecosistema ben conservat, com ara un alzinar frondós. Llavors ens podem preguntar si a l’època dels nostres besavis oferia el mateix aspecte, o com serà en el futur si el protegim dels perills i de la degradació (incendis, tales…). En aquesta unitat contestarem a aquestes preguntes i estudiarem els cicles biogeoquímics més rellevants i el flux de l’energia. Aprendrem que l’energia, l’aigua i els elements més importants per a la biosfera estan disponibles per als éssers vius i què en dificulta la utilització.
Els ecosistemes s’assemblen als organismes en el fet que els uns i els altres es construeixen en el temps. Contínuament estan edificant el seu present sobre el seu passat, de forma no del tot previsible, o poc previsible.
RAMON MARGALEF, Planeta blau, planeta verd (1992)
Com que la vida humana és massa curta en comparació de la d’un bosc i, en general, dels ritmes de la natura, els ecòlegs han estudiat els canvis que passen al llarg del temps en els ecosistemes, com ara la successió ecològica, aprofitant les circumstàncies i els llocs on la natura ofereix, de vegades, situacions excepcionals. A continuació, en veurem una d’espectacular.
El 27 d’agost de 1883, una violentíssima explosió, que es va sentir a milers de quilòmetres de distància, va originar unes ones gegants, tan altes com un edifici de 15 plantes. En va ser la causa una erupció volcànica que destruí l’antiga illa de Krakatau, entre Java i Sumatra. Només va quedar-ne un pujol, bastant més petit que l’antiga illa i ple de cendra, sense cap rastre de vida. Alguns biòlegs van entendre que era una oportunitat ideal per veure com es comportava un ecosistema i esbrinar si colonitzarien l’illa els mateixos organismes que hi vivien abans, en quin ordre i amb quina rapidesa s’hi instal·larien, si s’arribaria a una selva humida com la que hi havia o hi apareixeria alguna cosa diferent, etc.
Nou mesos després d’aquella catàstrofe, un naturalista que viatjava a bord d’un vaixell va arribar a l’illa i va buscar si ja hi havia formes de vida. Només va aconseguir trobar-hi una aranya microscòpica. Aquesta aranyeta havia arribat a l’illa arrossegada pel vent. Així van anar arribant molts altres organismes. Els ocells van arribar a la nova illa per l’aire i altres organismes, nedant; fins i tot hi van arribar serps i llangardaixos, com ara el Varanus salvator, que el 1899 ja era a l’illa. Alguns fins i tot van arribar-hi en arbres o en vells rocs volcànics porosos que suraven a la deriva.
A la tardor de 1884, hi va aparèixer l’herba; el 1886, el 1897 i el 1928 el nombre d’espècies presents va arribar a 15, 49 i 300, respectivament. S’ha constatat que durant els darrers cent anys el nombre d’espècies ha anat augmentant, tot i que cada vegada
Grup taxonòmic
Criptògames
Plantes amb flor
Anèl·lids
Mol·luscos terrestres
Insectes
Altres artròpodes
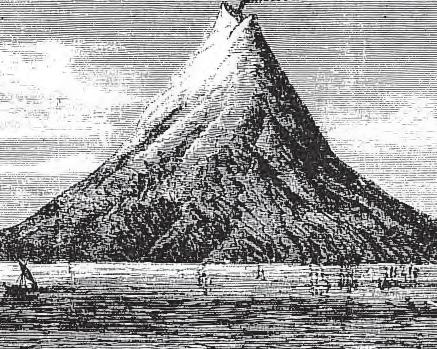
El volcà de Krakatau, segons un gravat de l’època.
Nombre d’algunes de les espècies de diferents grups taxonòmics a l’illa de Krakatau.
Nombre d’espècies censades Any 1908Any 1921Any 1933
Aquestes fotografies mostren la rodalia de la muntanya de Montserrat després de l’incendi de 1987 (a l’esquerra) i al cap de deu anys (a la dreta).
més lentament. Ja no és un lloc que ofereixi gaires oportunitats per als nous colons, que han de competir pels recursos amb altres espècies que hi han arribat abans. Aviat es va constatar que les espècies pioneres podien desaparèixer amb el pas del temps.
Sembla que la quantitat d’espècies tendirà a aturar-se en uns valors similars als que hi ha en altres illes semblants. Les espècies que arriben a l’illa amb més facilitat ja no augmenten en nombre i potser han arribat a un equilibri, però altres, com ara els mamífers o els cargols, encara necessitaran molt més temps per poder aprofitar al màxim les possibilitats de la nova illa.
Amb l’estudi de la successió dels organismes vius que formen cada ecosistema s’han anat trobant regularitats que descriuen prou bé l’evolució dels ecosistemes al llarg del temps. En l’ecosistema triomfen en cada moment les espècies que s’hi adapten millor, que no són les mateixes al principi de repoblar un territori, suposem, que al cap de 50 anys. L’arribada (o l’aparició) de les noves espècies, que substitueixen les anteriors, és ràpida al començament i més lenta després, fins que no hi ha recursos per encabir-hi noves espècies.
Les espècies pioneres són poc especialitzades, mentre que les que lentament les substitueixen ho són cada vegada més, fins al punt que poden arribar a desplaçar les primeres. Aquestes espècies que vénen més tard no podrien colonitzar un lloc nou sense la presència de les espècies pioneres, ja que aquestes últimes són les que proporcionen aliment a les espècies noves, les que fan ombra als plançons, etc. De fet, hi ha una analogia amb l’optimització dels oficis en la nostra societat actual, els quals van canviant i són cada vegada més nombrosos i especialitzats. Amb relació a això, l’ecologia distingeix dos tipus d’estratègies en les espècies: l’estratègia R, basada en l’alta capacitat de reproducció, i l’estratègia K, basada en un nombre més constant de descendents.
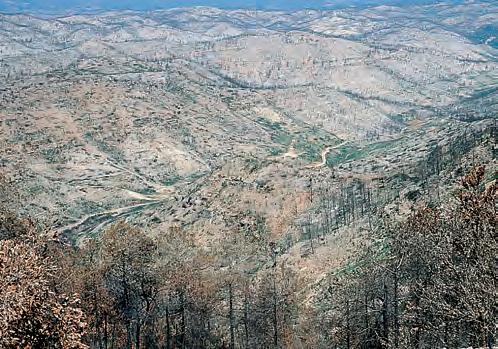
Prat humit
Drenatge
Prat de dall
Prat de pastura
Falguerar
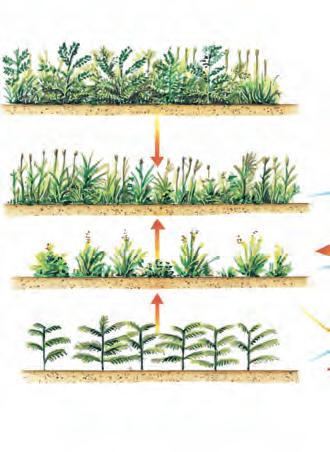
Dallada continuada
Estassada i pastura
Dallada o incendi i pastura
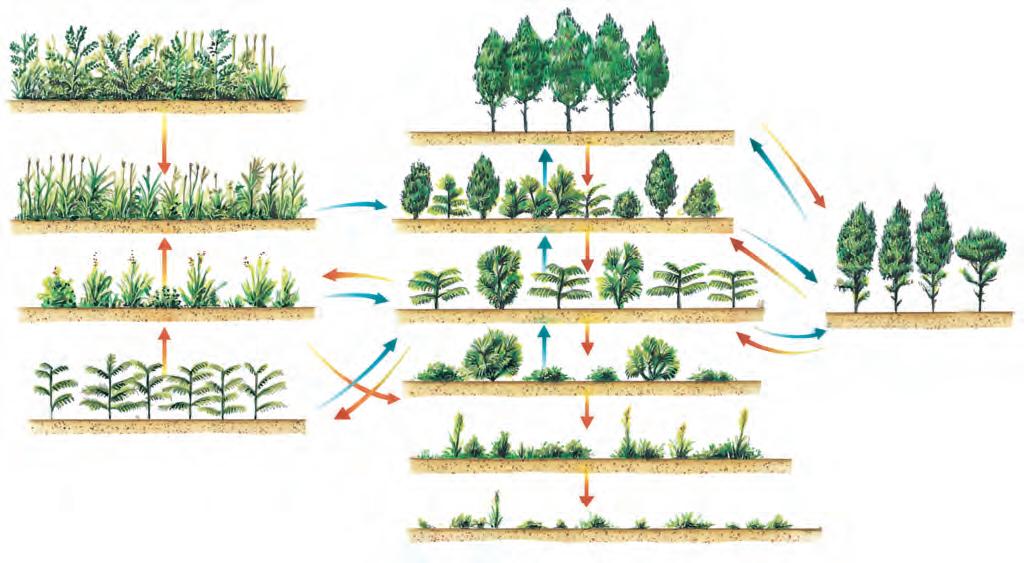
Pastura excessiva i erosió del sòl
La majoria d’espècies pioneres són espècies d’estratègia R, mentre que quan l’ecosistema és més madur les espècies que s’hi instal·len acostumen a ser d’estratègia K. Les rates i les gavines, per exemple, són espècies d’estratègia R, amb molts descendents, vida curta i molta mortalitat; en canvi, les àligues o els linxs, com també la majoria d’espècies protegides per la llei, són d’estratègia K, de vida més llarga, amb menys potencial reproductor i més cura dels descendents.
El relat de la colonització de l’illa de Krakatau pot fer pensar que hi ha un fort component d’atzar a l’hora d’explicar per què unes espècies arriben o no a un indret, però la sort només n’afavorirà algunes de característiques apropiades. Quan ha avançat la successió, sembla el resultat d’una acurada planificació. També l’evolució de les espècies té un component d’atzar en les mutacions, però al final produeix organismes ben adaptats al medi ambient.
La successió pot recomençar moltes vegades quan l’ecosistema ha fet alguna regressió, a causa, per exemple, d’una gran sequera o d’un incendi. Parlem de successió secundària quan la comunitat preexistent ha desaparegut, per diferenciar-la de la successió primària, que és la que es dóna en un lloc que abans no era ocupat per aquella comunitat.
En resum, la successió ecològica és un procés ordenat de desenvolupament de les comunitats, originat pel canvi de les espècies presents, tant pel que fa al nombre d’individus de cada espècie com per l’establiment d’espècies noves, que poden arribar a eliminar lentament les poblacions originàries. La successió s’efectua solament en una sola direcció i, encara que, com hem vist, torni a estadis anteriors, no segueix el mateix procés en un sentit i en l’altre.
i erosió del sòl
Aclarides selectives
Model de successió, degradació i reconstitució d’una roureda que mostra les relacions amb altres formacions vegetals, com ara prats, pinedes, matollars… Si la degradació és molt gran –estassades repetides, pastura excessiva, etc.–, el sòl pot quedar-ne afectat (per exemple perquè la pluja se l’enduu) i aleshores la successió ja no pot continuar, sinó que s’atura i es produeix una regressió.
Després dels incendis… què?
Hectàrees d’arbrat cremades (1993-2006)
En els països de clima eixut els incendis naturals afecten habitualment la vegetació. És el cas de la sabana, de les garrigues i dels boscos mediterranis. Fins i tot hi ha espècies que, com ara el pi blanc, són piròfites, és a dir, estan acostumades al foc i presenten adaptacions (les escorces aïllants, els pinyons protegits, etc.) que els permeten reviure després d’un incendi. Però si els incendis sovintegen és cada cop més difícil que la vegetació pugui refer-se. Més que represa de la successió, aleshores hi ha regressió. Els incendis destrueixen cada any una gran superfície forestal. Com a tantes contrades mediterrànies, a Catalunya s’han cremat molts boscos en els darrers anys, i hi té molt a veure l’activitat humana, la qual és sovint causa d’accidents, imprudències o conductes negligents i delictives.
9394959697989900010203040506 993,26
Hi ha una gran preocupació per recuperar aquestes superfícies cremades. La conservació dels boscos és important per moltes raons: ètiques, estètiques, econòmiques, etc. Des del punt de vista de l’ecologia, cal tenir present que els boscos fan unes funcions importantíssimes per al manteniment del clima i de la biosfera.
Distribució de les causes d’incendi forestal en percentatge
Per als còmputs oficials no es tenen en compte els incendis més petits de 50 hectàrees. Causes naturals
Negligència (crema agrícola, fumadors, treballs forestals i altres) 40,83%
De vegades s’ha intentat repoblar un bosc cremat amb les espècies que creixen més de pressa. És més lògic fer-ho amb les que hi vivien, ja que sembla assegurat que estaran ben adaptades al tipus de terreny, a la pluviositat, etc. Així, si desapareix un alzinar, repoblaríem el terreny amb plançons d’alzina, mentre que si es tracta d’una pineda de pi blanc, hi reimplantaríem aquest pi. Si més no, aquest procediment permet de guanyar alguns anys i afavoreix el procés de successió.
Accidents (més de la meitat dels quals en línies elèctriques) 10,54%
Intencionats
Els resultats, però, no sempre són prou bons. El procés de recuperació del bosc és lent, i arbres com ara l’alzina creixen lentament i necessiten més ombra de la que troben fora del bosc. Hi ha veus que asseguren que poca cosa s’hi pot fer, tret de deixar que la natura tardi un segle llarg a arreglar tota sola els desastres. En qualsevol cas, la prevenció és importantíssima per evitar que el bosc cremi. Les causes dels focs són generalment les accions directes o indirectes de l’activitat humana. A banda dels incendis provocats deliberadament, són causes freqüents d’incendis les costellades, la crema de rostolls o els contactes accidentals de la vegetació amb la xarxa elèctrica.
La solució de problemes com ara la regeneració dels boscos cremats, d’una gran importància social, està molt relacionada amb el que s’estudia en aquesta unitat: el comportament dels ecosistemes en el temps.
Acaba la successió en un ecosistema? Quan? Com?
Hem vist que la successió de les espècies en un ecosistema és més ràpida en les primeres etapes que en les posteriors. Això fa pensar que la incorporació de noves espècies en un ecosistema amb el temps arribarà a ser petitíssima o, fins i tot, a aturar-se.
Els ecòlegs anomenen clímax l’etapa final d’un ecosistema. En aquest moment és quan l’ecosistema té la màxima diversitat d’espècies (paràmetre ecològic que assenyala la riquesa relativa en espècies d’un ecosistema) i la màxima biomassa (massa total de la matèria viva que hi ha en una comunitat o en un ecosistema).
S’anomenen dominis bioclimàtics o biomes les comunitats clímax que, a escala mundial, corresponen a cada àrea geogràfica on ocupen –com a resultat de la successió ecològica– els indrets més apropiats. L’etapa del clímax coincidirà, si hi ha prou temps per a la successió, amb l’assoliment de la vegetació potencial del lloc en qüestió. Així, el clímax de bona part de les terres baixes catalanes seria l’alzinar. Aleshores, per què no hi ha alzinars arreu?
La resposta té molt a veure amb l’activitat humana, que obté més beneficis immediats d’un ecosistema en els primers estadis de la successió que no pas d’un ecosistema madur. Un ecosistema madur, en la seva etapa de clímax, és format per espècies que creixen lentament i, per tant, ofereix un benefici lent. D’aquesta manera, els alzinars han estat substituïts de mica en mica per conreus o per espècies que creixen més de pressa.
Si a més a més del concepte de biomassa tenim en compte el concepte de productivitat (la producció de biomassa d’un organisme, d’una població o d’una comunitat, per unitat de temps), entendrem millor la situació de clímax. Cal tenir present que en aquesta situació la biomassa i la productivitat són totes dues altes i, per tant, el quocient entre la producció i la biomassa és petit. Vist en termes d’eficiència, doncs, es pot dir que el clímax és una etapa de l’ecosistema poc productiva, ja que la producció primària és molt semblant a la quantitat de matèria orgànica consumida en la respiració.
Hem d’entendre que en el món real el clímax no és una situació estàtica. Un ecosistema no s’estabilitza mai totalment, perquè hi ha una evolució contínua en les espècies que proporciona novetats constants. A les selves tropicals, per exemple, després de molts anys d’evolució amb molt pocs canvis (les glaciacions no hi van arribar), hi viuen moltíssimes espècies, la majoria de les quals encara s’han d’estudiar. Sembla cada vegada més clar que sovint les interaccions entre les espècies no arriben mai a una situació estable, sinó que les poblacions d’unes i altres varien segons el lloc i el moment. Si cada espècie eliminés els seus competidors, la diversitat de la biosfera no seria tan gran.
Regularitats de la successió
En una successió ecològica ideal es poden observar les regularitats següents:
1) Les espècies pioneres o oportunistes són característiques de l’inici de la successió. Es tracta d’espècies de vida curta i cicle biològic ràpid, amb facilitat per a la dispersió i amb una taxa de reproducció elevada.
2) A mesura que avança la successió, van apareixent espècies de creixement més lent (estrategues de la K) però més ben adaptades. Augmenta també la biomassa total i disminueix la taxa de renovació (quocient producció/biomassa).
3) Amb la progressió del procés augmenta la diversitat, tipificable amb dos índexs de diversitat característics: espècies diferents presents en l’ecosistema (que augmenten) i espècies dominants (que disminueixen o desapareixen del tot).
4) Els canvis, que al principi són relativament ràpids, s’alenteixen a mesura que avança la successió.
5) Els ecosistemes madurs són molt més complexos que els inicials. El flux de l’energia hi és més lent, té moltes més etapes i les cadenes tròfiques es ramifiquen i s’allarguen.
El clímax és l’etapa final de la successió ecològica. Es caracteritza per tenir la màxima diversitat d’espècies i la màxima biomassa. Tanmateix, en el clímax el quocient entre la producció i la biomassa és petit.
En termes d’ecologia, la unitat fonamental no és pas l’individu, sinó la població; és a dir, el conjunt d’organismes de la mateixa espècie que ocupen un determinat espai geogràfic. Les poblacions tenen característiques que els individus no presenten, com ara el creixement demogràfic, l’edat mitjana o la taxa de mortalitat. Els individus d’una població comparteixen un únic patrimoni genètic. Són també, doncs, unitats evolutives.
Els principals tipus de poblacions biològiques són les poblacions familiars, les poblacions gregàries i les societats.
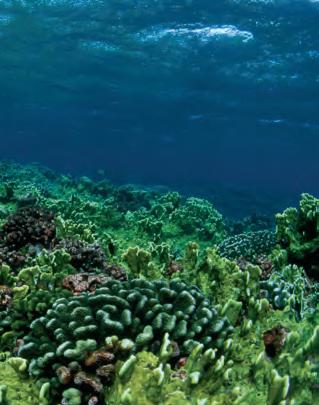
Colònies de madrèpores.
Les formigues formen societats col·lectivistes fortament jerarquitzades.
En les poblacions familiars els individus es mantenen units per lligams de parentiu. Les famílies poden ser monògames,amb una sola femella reproductora; polígames,amb un mascle i unes quantes femelles reproductores, o constituïdes solament per les cries que, sovint, passen les primeres fases de la seva vida conjuntament.
Les poblacions gregàries són les constituïdes per l’agrupació de nombrosos individus d’una mateixa espècie (estols, moles, ramats), però sense que hi hagi entre ells relacions de parentiu. L’agrupament gregari augmenta les possibilitats i les defenses de l’individu que, amb el suport del grup, pot fer-se més fort o més eficaç.
Les colònies són agrupacions físiques d’organismes que es mantenen adherits físicament perquè s’originen a partir d’un únic individu fundador per reproducció asexual o gemmació. Són característiques les colònies de celenteris, entre els quals hi ha les de les madrèpores i els coralls.
Les societats són agrupacions d’organismes que es caracteritzen per l’existència de lligams, no físics sinó fisiològics, i per la divisió del treball. Les societats es caracteritzen per l’organització cooperativa dels seus membres. S’anomenen societats col·lectivistes aquelles en què es produeix una divisió del treball entre castes d’individus que es diferencien entre si per caràcters morfològics i fisiològics. Entre els insectes, són típiques les societats de les abelles, les formigues i els tèrmits, amb poblacions estructuralment molt complicades, formades de vegades per molts milers d’individus en les quals la cohesió es manté principalment per mitjà d’estímuls químics o feromones.
Demografia
Moltes de les característiques d’una població poden expressar-se de forma estadística. La densitat de població es defineix com el nombre d’individus existents per unitat de superfície. La densitat poblacional de les diferents espècies varia d’un hàbitat a un altre i també pot variar al llarg dels anys. La densitat s’expressa sovint en funció de la biomassa per unitat de superfície o de volum. Amb freqüència, es diferencia la densitat absoluta o bruta,que correspon a la definició anterior, de la densitat específica o ecològica,que és el nombre d’individus, o la biomassa, per unitat d’espai habitable. D’altra banda, s’anomena índex de natalitat el nombre d’individus que neixen per unitat de temps. Algunes estimacions de natalitat són molt teòriques i poc pràctiques. En canvi, la natalitat real (o natalitat ecològica) és més
útil. Aquesta es pot definir com l’augment del nombre d’individus en les condicions normals en un determinat ambient.
De manera semblant, es pot estudiar la mortalitat S’anomena mortalitat real la que es produeix realment en les condicions ambientals naturals: és el resultat de sumar a la mortalitat teòrica derivada de l’envelliment de la població la mortalitat produïda per altres causes, fortuïtes si es vol, però igualment reals. També s’usa el denominat índex de mortalitat, que és el nombre d’individus que moren per unitat de temps.
Però el creixement d’una població pot ser que no sigui fruit únicament del balanç entre natalitat i mortalitat. La immigració afegeix nous individus a una població i això augmenta el nombre d’individus reproductors i, en conseqüència, la descendència. S’anomena índex de creixement l’augment o la disminució dels individus d’una població per unitat de temps.
Piràmides d’edats
Les piràmides d’edats de la població i les corbes de supervivència de les poblacions naturals tenen – igual que la demografia humana– una gran importància per fer
La primera part de la il·lustració mostra tres models de piràmides: amb un percentatge gran (esquerra), moderat (centre) i petit (dreta) d’individus joves. La segona part mostra dues poblacions del ratolí Microtus agrestis: una en expansió exponencial en un medi en el qual els recursos disponibles encara no són limitants (esquerra) i una d’estabilitzada (índex de natalitat = índex de mortalitat) (dreta). La tercera part mostra les piràmides d’edat de dues poblacions humanes amb poc creixement en tres moments de la seva història (1861, 1901 i 1931). La columna de l’esquerra representa una població més envellida que ocupa un hàbitat menys favorable que la de la dreta.
Edat
Tipus de piràmides d’edat
Percentatge en classe d’edat
Població de ratolins
Percentatge en classe d’edat
Corbes de supervivència de l’ésser humà en el Primer Món (A), de les gavines (B) i de les ostres (C).
Corba de supervivència de la palmera Euterpe globosa.
prediccions de futur. Són importantíssimes, per exemple, per calcular els rendiments i l’explotació sostenible a què pot estar sotmesa una determinada espècie o ecosistema (capacitat de càrrega) d’interès econòmic.
El gràfic del capdamunt de la pàgina mostra les corbes de supervivència de les poblacions humanes en el Primer Món (A), de les gavines (B) i de les ostres (C). En el primer cas, un cop passats els primers mesos, en què els perills del part i les malalties de la infància augmenten el risc de defunció, la corba s’aplata considerablement. Entre les poblacions naturals, en canvi, la mortalitat no depèn, de manera significativa, de les malalties degeneratives pròpies de l’edat avançada. En les gavines (B), la taxa de mortalitat és molt alta ja des del naixement, a conseqüència de factors molt diversos (depredació, competència amb altres gavines, infeccions, clima…) i ho continua sent un cop completat el desenvolupament com a conseqüència de la predació i de les malalties. La corba resultant és gairebé una línia descendent. En canvi, l’ostra (C) té una gran mortalitat en fase juvenil, mentre la larva és desprotegida, però els pocs exemplars que aconsegueixen fer-se adults són gairebé inexpugnables a l’interior del seu estoig.
sota
Leigh van Valen va estudiar la supervivència de la palmera de Puerto Rico Euterpe globosa. Com pots veure en el gràfic, en resulta una corba de mortalitat força comuna a molts altres organismes. Al principi la taxa de mortalitat és elevadíssima; moltes llavors no aconsegueixen germinar, ja que són molts els organismes que se n’alimenten, i les que ho fan tenen serioses dificultats per establir-se en el sotabosc a causa de la forta competència i de les dures condicions ombrívoles imposades pels arbres de gran port. Ara bé, les palmeres que s’han desenvolupat tenen una mortalitat molt més baixa perquè són més immunes als atacs del organismes herbívors i, després d’obrir-se camí fins al dosser arbori, disposen de prou llum i tenen la supervivència raonablement assegurada. Només a partir dels 150 anys les baixes tornen a augmentar a causa de l’edat avançada.
La dinàmica de les poblacions
Què fan les poblacions al llarg del temps? Com els afecten els canvis exteriors? Un ecosistema és format per moltes espècies, raó per la qual, a fide conèixer què fan les poblacions dels organismes al llarg del temps, és més adequat estudiar com evoluciona una sola d’aquestes espècies. Suposem un cas ben senzill: el d’una única espècie que, com que viu en un medi ambient on els recursos són limitats, no pot créixer indefinidament. Així, per exemple, si hi ha gaires conills, disminuirà el seu aliment, l’herba, cosa que farà minvar la població de conills. Si els conills es reprodueixen a un ritme apropiat, tard o d’hora s’adequarà la població amb les possibilitats d’aliment que li ofereix el medi ambient. Llavors, es pot arribar a un equilibri o bé a una situació de fluctuació de les poblacions, tal com es descriu en l’exemple que hi ha a continuació.
Fluctuacions
El model següent, el qual, com tots els models, és més senzill que la realitat, ens permet veure que, a més d’equilibrar-se, també són possibles fluctuacions de les poblacions, i ben sorprenents, per cert. Donada una població de conills determinada, la seva població futura (PF) dependrà de la població actual (P) i de la fecunditat (F), segons la fórmula següent:
Població futura de conills = fecunditat · població actual · (1 – població actual) (PF) = (F) · (P) · (1 – P)
Ara, per facilitar el càlcul, acordarem que el valor de la població actual de conills pot anar des de cap conill fins a un: tot l’ecosistema ple de conills, al 100%, és el valor 1.
Si la població actual de conills és de 0,8, és a dir, el 80% del que l’ecosistema pot resistir (per tant, molt alta), i si assignem a la fecunditat dels conills una mitjana de 2 descendents que arribin a reproduir-se, la fórmula permet calcular que la població passarà a ser aquesta:
PF = 2 · 0,8 · (1 – 0,8) = 0,32
Per què aquest descens? Perquè hi havia tants conills (80% dels conills possibles) que entre tots han consumit molts recursos, de manera que el nombre s’ha reduït fins al 32%. Què passarà en la reproducció següent? I en l’altra? Quan s’estabilitzarà la població de conills?
PP = 2 · 0,32·(1 – 0,32) = 0,4352
PP = 2 · 0,4352·(1 – 0,4352) = 0,49160192
PP = 2 · 0,4916·(1 – 0,4916) = 0,4998, etcètera
La població s’acosta a 0,5. Amb el pas del temps hi haurà, per tant, el 50% dels conills possibles. És fàcil comprovar que si la fecunditat és inferior a 1, la població baixa en cada generació i s’extingeix. Si la fecunditat és de 2,7, també s’arriba a un equilibri per a una població de 0,6292, és a dir, gairebé el 63% dels conills que hi poden viure.
Els ecosistemes es modifiquen al llarg del temps en un procés dinàmic sotmès a fluctuacions.
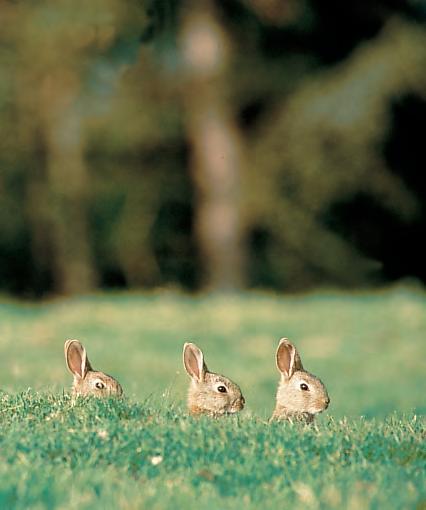
Corbes de creixement de poblacions:
A) cultiu amb només Paramecium aurelia; B) cultiu amb només Glaucoma scintillans; C) cultiu amb ambdues espècies; D) i E) cultius amb les espècies
Paramecium bursaria i Paramecium aurelia, juntes però en condicions lleugerament diferents.
(Segons Gauze, 1935)
Paramecium aurelia
6 4 Individus2 en 0,5 cc 2468101214
6 4 Individus2 en 0,5 cc 2468101214 Glaucoma scintillans
Si la fecunditat passa de 3, la població oscil·la entre dos valors fixos, mentre que si és de 3,5, fa cicles de 4 valors.
Però allò que va sorprendre els primers ecòlegs que ho van estudiar és que no s’arriba a cap equilibri si la fecunditat supera, per exemple, 3,8. Llavors apareix una oscil·lació absolutament caòtica de la població, i mai no s’arriba a la seva estabilitat, sinó que varia sempre.
Càlculs com aquest, entre d’altres, fan sospitar que al llarg del temps les poblacions, i potser els ecosistemes i fins i tot la biosfera sencera, no van sempre cap a situacions més estables, ja que, segons mostren els models, hi ha descripcions matemàtiques de la dinàmica de les poblacions que reflecteixen una inestabilitat persistent.
D’altra banda, també es pensava que les oscil·lacions en les quantitats d’un predador i de la seva presa havien de dur a un equilibri, però paral·lelament hi ha raons per pensar que no sempre és així.
En definitiva, direm que les relacions tròfiques duen a un equilibri essencialment dinàmic i alterable no tan sols a causa de les actuacions humanes.
Fins i tot alguns grans canvis que hi ha hagut en el passat podrien interpretar-se d’aquesta manera. Durant el cretaci, per exemple, hi va haver una gran extinció d’espècies, com ara els dinosaures, i el mateix va passar durant el juràssic, el triàsic i el pèrmic, en què l’extinció d’espècies va ser molt més important. La comunitat científica atribueix la causa de les extincions a fenòmens naturals de la biosfera, a vegades catastròfics.
Competència
Paramecium aurelia
Glaucoma scintillans
6 4 Individus2 en 0,5 cc 2468101214 Dies
Paramecium bursaria
6 4 Individus2 en 0,5 cc 2468101214
Paramecium aurelia
Paramecium aurelia
Paramecium bursaria 6 4 Individus2 en 0,5 cc 2468101214
L’any 1935, el biòleg de la Universitat de Moscou Gueorgui F. Gauze va publicar els resultats dels seus experiments de cultiu d’infusoris de les espècies Paramecium aurelia i Glaucoma scintillans, dos organismes eucariotes unicel·lulars. Criats separadament i mentre disposen de prou recursos alimentaris, cada població augmenta segons una corba logarítmica fins a aplatar-se. Ara bé, quan entren en competència –quan es crien junts, en el mateix tub–, segons Gauze, «l’espècie Glaucoma scintillans aconsegueix apoderar-se de tots els recursos alimentaris d’aquell microcosmos més o menys en el moment en què l’espècie Paramecium aurelia comença a augmentar i, després, en el transcurs de fluctuacions elementals de la població, l’expulsa totalment». Per quina raó? Per què els nínxols ecològics d’ambdues espècies se solapen i Paramecium aurelia desapareix superada per Glaucoma scintillans?
Gauze trobà resultats equivalents en experiments amb dues espècies molt properes –de nínxols molt similars– de Paramecium, l’esmentat Paramecium aurelia i el Paramecium caudatum. Separadament, tots dos progressaven bé, en canvi, junts, el primer desplaçava ràpidament el segon.
En una tercera sèrie d’experiments, Gauze cultivà dos paramecis (el Paramecium bursaria i el Paramecium caudatum) que tenen nínxols diferents. El resultat va ser que mentre el primer s’instal·lava al fons (gairebé anaerobi) del tub, ja que té algues simbiòtiques que li faciliten l’oxigen, el segon ho feia a la superfície. Els resultats –una mena de coexistència pacífica–, Gauze els descriu de la manera següent: «Cadascuna d’aquestes espècies té un nínxol ecològic especial, en el qual obté més profit dels recursos nutritius que l’altra espècie, i d’aquesta manera es molesten menys.»
Com ja hem vist, s’anomenen dominis bioclimàtics o biomes les comunitats clímax que corresponen a cadascuna de les grans àrees geogràfiques del planeta.
La distribució de plantes i animals en els biomes terrestres depèn de la temperatura i de les precipitacions, factors climàtics que varien en funció de la latitud, l’altitud, els corrents marins, la distància des del mar (continentalitat), etc.
Els principals biomes terrestres són les pluviïsilves tropicals (amb abundants precipitacions tot l’any) i les subtropicals (amb una estació una mica menys plujosa que la resta). Ambdues són pròpies de climes tropicals sense hivern, igual que el bosc monsònic, que presenta, però, una repartició anyal molt desigual de les abundantíssimes precipitacions. Per la seva banda, les sabanes (amb una estació seca i una d’humida) i els deserts i els semideserts (amb precipitacions molt escasses) corresponen a climes tropicals àrids. La vegetació mediterrània és pròpia de zones amb hiverns suaus i estius càlids i eixuts, mentre que els boscos caducifolis nemorals (amb precipitacions força abundants i estacions ben marcades) són propis de latituds superiors, igual que les estepes, les praderies i les pampes (amb hiverns freds i humits i grans amplituds tèrmiques). A més latitud encara, trobem la taigà (amb boscos de coníferes), que aguanta bé el fred hivern, i, finalment, la tundra àrtica (amb hiverns molt llargs i molt freds, sòl glaçat i estiu molt curt), que té el seu equivalent en la vegetació alpina de les altes muntanyes.
Els principals biomes terrestres.
Pluviïsilves tropical i subtropical
Bosc monsònic
Sabanes
Deserts i semideserts (tropicals i temperats)
Vegetació mediterrània
Boscos caducifolis nemorals
Estepes, praderies i pampes
Taigà
Tundra àrtica
Vegetació alpina
Esquema idealitzat dels diferents hàbitats del
3.1. Els biomes marins
En els biomes marins, la distribució dels organismes depèn fonamentalment de la llum, dels nutrients disponibles, de la temperatura i de la salinitat. Per aquesta raó, més que distingir diferents regions biogeogràfiques té més rellevància diferenciar els tres grans estils de vida: el bentos, el nècton i el plàncton.
Bentos
S’anomena bentos el conjunt de plantes i animals aquàtics que viuen sobre el fons. Els organismes bentònics o són filtradors o bé s’alimenten de sediment: alguns el remenen constantment amb els seus bigotis, mentre que altres hi excaven galeries o s’enterren a la sorra. També n’hi ha que perforen la roca o la closca d’un altre organisme o bé s’hi adhereixen.
Alguns organismes bentònics, com ara les algues o les esponges i les anemones, viuen fixos al substrat (són sèssils). Altres, com ara les garotes o les cloïsses, poden desplaçar-se, encara que sovint de forma limitada (són vàgils). El bentos vegetal de les nostres costes és format per algues i per fanerògames marines, com per exemple la Posidonia i la Zostera, que formen els denominats alguers, situats entre 10 i 30 m de fondària.
Considerant que el nivell de marea més baix que es pot calcular periòdicament en una costa es pren com a nivell zero, en la distribució dels organismes bentònics es pot distingir la zonació següent:
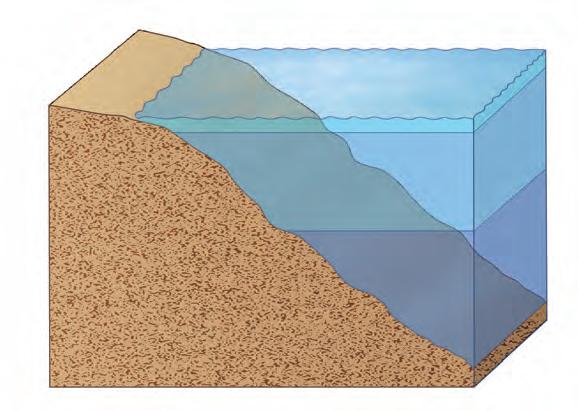
– Estatge supralitoral. Comença a partir d’on mai no arriba l’aigua. L’ocupen els organismes que no necessiten estar submergits i en tenen prou amb l’aigua que els arriba dels esquitxos de les onades.
– Estatge mesolitoral o intermareal Comprèn l’espai de màxima amplitud del vaivé de marea. L’ocupen els organismes que requereixen o toleren la immersió, però que no poden viure permanentment submergits.
– Estatge infralitoral. Va des del punt de marea més baix fins a la desaparició progressiva de les fanerògames marines (entre 15 i 35m de fondària), segons la transparència de les aigües.
– Estatge circalitoral. S’estén des de la zona de desaparició de les fanerògames fins on arriba tan sols el 0,5% de la llum incident i ja no és possible la vida vegetal (uns 70-75m). Per sota ja només hi ha organismes heteròtrofs i descomponedors que en bona part es nodreixen de l’excés de producció de les zones superiors.
Nècton
És el conjunt d’organismes que poden desplaçar-se independentment dels moviments de les aigües. Els components del nècton neden activament, ja sigui a la zona nerítica, més o menys prop de la costa, o en ambients pelàgics de mar obert. Entre els nombrosos organismes que formen el nècton hi ha, per exemple, la tonyina, el peix espasa, el seitó, la sardina, el verat i l’arengada. La coloració d’aquests peixos, d’un gris fosc o blavós al dors i platejada al ventre, resulta críptica per l’ambient on viuen: mirats des de dalt, el color fosc del llom desdibuixa la silueta sobre l’obscur fons de les aigües profundes; mirats des de baix, el color platejat es confon amb la claror del sol. En el nècton també hi ha cefalòpodes, com ara els calamars; rèptils, com ara les tortugues marines, i grans mamífers, com per exemple els dofins i les balenes.
Plàncton
És la comunitat biòtica formada pels petits organismes, animals i vegetals, que viuen en suspensió a les capes més superficials de les aigües (molts disposen de mitjans de flotació específics: bombolles d’aire, gotes d’oli, pèls i espines, etc.). Tot i que n’hi ha força que tenen sistemes propis de desplaçament, de fet es mouen de forma passiva a mercè dels corrents marins i dels vents.
Per estudiar el plàncton, cal colar l’aigua amb una xarxa, en forma d’embut, feta de tela molt fina (malla de menys de 0,1 mm) que en reté els components. Les algues, és a dir, la fracció vegetal del plàncton, constitueix el fitoplàncton, mentre que els animals formen el denominat zooplàncton
Si les condicions són adequades, la taxa de renovació del plàncton és molt ràpida i compensa el consum continu i actiu que en fan els animals marins, com també la seva sedimentació constant. El plàncton té les característiques d’una comunitat poc madura: organismes de vida curta, molt prolífics i poc especialitzats, o amb sistemes d’alimentació automàtics, com ara la filtració.
Les algues del plàncton, o fitoplàncton, tenen una gran importància perquè són les úniques plantes que hi ha a mar obert, més enllà de la costa, i són les responsables de la major part de la producció primària al mar.Constitueixen, per tant, la base de l’alimentació de gairebé tots els animals marins, començant pels del zooplàncton. Les algues planctòniques poden ser lliures
Les algues microscòpiques constitueixen el fitoplàncton o fracció vegetal del plàncton.
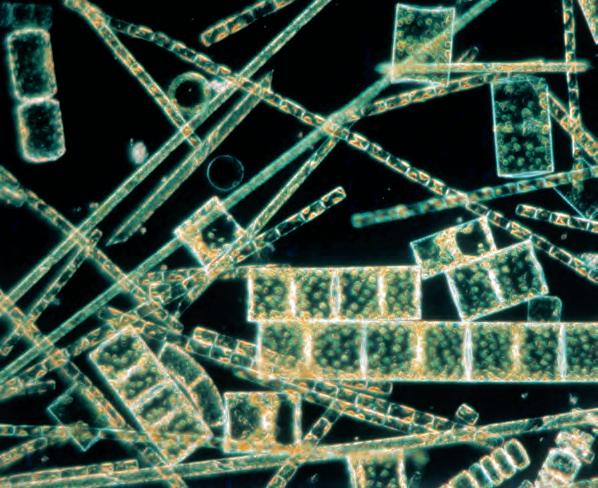
o poden formar colònies, i la seva mida oscil·la entre els 10 i els 200mm. Les més abundants pertanyen al grup de les diatomees, les dinofícies o dinoflagel·lades, les esquizofícies i les feofícies.
Si comparem el fitoplàncton amb els productors primaris terrestres (arbres, herbes, etc.), comprovarem que, mentre que aquests darrers utilitzen bona part de l’energia per crear importants estructures (arrels, teixits conductors i de sosteniment, etc.) necessàries en el medi terrestre, les algues planctòniques –que tenen, en canvi, molt poca complexitat estructural–, fan servir l’energia captada per reproduir-se contínuament. El temps de duplicació d’aquestes algues varia entre un dia i pocs dies. Els factors limitadors en la renovació de les algues són la disponibilitat de nutrients i de llum, que comença a escassejar a partir dels 50 metres de fondària.
Els menuts crustacis copèpodes són molt abundants en el zooplàncton.
Entre els animals del zooplàncton n’hi ha de fitòfags, de carnívors i d’omnívors. Hi són representats la major part dels grups d’invertebrats: mol·luscos, protozous, anèl·lids, celenteris, etc., si bé els més abundants són els crustacis (i d’una manera especial els copèpodes, que formen entre un 20 i un 80% del total del zooplàncton). En realitat, d’animals planctònics se’n poden distingir dos grups ben diferents: els petits organismes que durant tota la seva vida formen part del plàncton i les larves d’altres organismes més grossos que un cop adults viuen en un altre indret. Aquest és el cas de molts dels animals bentònics: les larves de les estrelles de mar, de les garotes, dels cucs, de les pagellides, dels cargols de mar, dels crancs i dels coralls formen part del plàncton. També hi sol haver ous d’animals superiors.
Fou Alexander von Humboldt (1769-1859) qui assenyalà per primera vegada no tan sols les regularitats existents en la distribució d’animals i plantes en funció dels climes, sinó també el paral·lelisme existent entre l’efecte de la latitud i el de l’altitud. D’alguna manera podríem dir que a mesura que ascendim per una serralada se succeeixen a la nostra vista els mateixos dominis de vegetació que –a una escala més gran– trobem a mesura que ens apartem de l’equador en direcció als pols.
La península Ibèrica, situada a l’extrem sud-occidental d’Europa i inclosa en el regne holàrtic, està dividida climàticament en dues parts.
L’una, septentrional i limitada, presenta espècies i formacions vegetals pròpies de la regió eurosiberiana, que a Euràsia s’estén per sota la zona àrtica fins a uns 40°N. Aquesta vegetació es caracteritza septentrionalment per la taigà (bosc de pins i avets de fulla persistent) i a latituds més mitjanes pels boscos nemorals (selves d’arbres de fulla plana i caduca). L’altra part, molt més estesa a Espanya, és de clar influx mediterrani. La regió mediterrània, que a Europa s’estén entorn d’aquest mar entre els 30°i els 45°N, però que té els seus equivalents en les mateixes latituds de les façanes occidentals dels diversos continents (Xile, Califòrnia, Austràlia i República de Sud-àfrica), es caracteritza per vegetacions esclerofil·les, verdes tot l’any, com ara els alzinars a la riba del Mediterrani, i les màquies o bosquines eixutes i denses en indrets més àrids, també formades per arbustos esclerofil·les.
Els estatges de vegetació
En un país muntanyenc com el nostre, en els cims de les grans muntanyes hi ha espècies pròpies de la tundra àrtica i de l’alta muntanya europea, és a dir, de la tercera regió biogeogràfica europea, la boreoalpina. Així doncs, als Països Catalans hi ha representats, des dels cims dels Pirineus fins a les planes litorals, els tres dominis de vegetació. Com que l’altitud és el factor que determina el predomini d’un tipus de vegetació sobre un altre tipus, s’utilitza el concepte de pis, estatge o zona estratificada. Malgrat que els límits concrets varien en funció de les circumstàncies locals (en bona part per l’orientació, ja que no és el mateix un vessant assolellat que un d’obac), s’acostuma a designar com a terra baixa el territori que no ultrapassa els 800 o 1000m d’altitud, com a muntanya mitjana el territori comprès entre els 800 o 1000m i els 1600 o 1800m, i alta muntanya el que se situa per sobre dels 1600 o 1800m.
D’una manera molt general, es pot considerar que la terra baixa catalana té
Regió eurosiberiana
Regió mediterrània
Alta muntanya
Regió macaronèsica
Dominis de vegetació a la península Ibèrica i a les illes Canàries.
Dominis de vegetació a Catalunya.
Prat alpí
Bosc de pi negre
Fageda
Bosc de pi roig
Roureda
Alzinar
Màquia
Vegetació de ribera
a) Alzinar.
b) Bosc de pins negres.
c) Prat alpí.
Els estatges de vegetació en una zona mediterrània.
una vegetació mediterrània típica (alzinar, màquia o, si l’aridesa és molt gran, espinar), mentre que és a la muntanya mitjana on es troben la major part dels elements eurosiberians de la vegetació (centreeuropeus o atlàntics, segons la circumstància geogràfica concreta) amb els típics boscos de fulla caduca (rouredes, fagedes, etc.) que deixen lloc, en els indrets humanitzats, als prats de dalla típics de la nostra muntanya mitjana humida. De totes maneres, si el clima és molt sec, com succeeix a les muntanyes meridionals i especialment a les del migjorn valencià, la vegetació mediterrània pot superar, i de molt, els 1000 m d’altitud.
Finalment, a l’alta muntanya hi trobem molt ben marcats dos estatges o subzones: l’alta muntanyasubalpina, d’influència encara eurosiberiana i equivalent a la taigà del nord d’Europa, amb els típics boscos d’avets (avetoses) i de pi negre (l’arbre que resisteix més altitud), i l’alta muntanya alpina, clarament boreoalpina i equivalent a la tundra àrtica, caracteritzada pel prat alpí, ja que les neus hivernals fan impossible la vida de l’arbrat.
Aquestes són les grans unitats del paisatge vegetal català, però a part hi ha, és clar, les formacions vegetals pròpies d’indrets més concrets, com ara els aiguamolls, els roquissars costaners, els penya-segats, etc. En aquest sentit són prou conegudes les formacions vegetals de ribera que acompanyen el curs dels corrents d’aigua, sovint en forma de túnel i formant una estreta franja a banda i banda. Entre aquesta vegetació cal esmentar, per exemple, la verneda (d’influència eurosiberiana), el baladrar i el tamarigar (més difosos en les zones mediterrànies) o les salzedes, que es poden trobar una mica pertot arreu.
litoral Zonació
Subalpí Montà
Terra baixa
Boscos de pi negre i d’avets
Fagedes
Rouredes
Pinedes de pi roig
Bosc de roure de fulla petita
Alzinar
1600-1800 m
800-1000 m Alzinar muntanyenc
Màquia continentalMàquia litoral Espinar
Vegetació potencial i actual
Les unitats paisatgístiques descrites anteriorment no ocupen ni de bon tros tota l’àrea considerada. Fins i tot algunes estan limitades a indrets molt circumscrits i reduïts, i és que l’acció humana ha modificat profundament el medi vegetal (amb la tala, la pastura, l’ús agrícola del sòl, l’ocupació urbana, els incendis, etc.). De manera que una cosa és la vegetació potencial, la que les condicions ecològiques d’un indret permeten, i l’altra, la vegetació actual
Així, per exemple, a la terra baixa mediterrània l’eliminació dels arbres (sovint per afavorir les pastures) canvia les condicions de vida de les plantes de la comunitat (les amants d’ombra, per exemple, desapareixen ja que no poden suportar el sol que ara hi cau de ple, mentre que les que el suporten es multipliquen). Tot plegat fa que s’instauri una comunitat arbustiva, sense arbres, dominada pel garric: la garriga. A causa dels incendis o les pastures excessives, la garriga degenera sovint fins a vegetacions arbustives més esclarissades o brolles, que poden ser brolles d’estepes o brolles riques en plantes oloroses (espígol, farigola, etc.). Moltes vegades les brolles, en el seu procés de recuperació (successió ecològica), incorporen un estrat arbori secundari, especialment de pins. És el cas de la majoria de pinedes de pi blanc de la terra baixa, que no constitueixen autèntics boscos, ja que no arriben a filtrar els rajos de sol. Les brolles, que són molt inflamables, es degraden fàcilment sota la pressió humana. Un cop cremades, les comunitats que pugen damunt les cendres ja no són arbustives, sinó herbàcies, dominades pel fenàs (els fenassars).
A la muntanya, l’alteració del bosc original comporta sovint la seva substitució per matolls i landes, bosquines baixes força denses i humides riques en brucs, brugueroles, gatoses o ginestes (en el cas dels matolls són freqüents el bàlec i la gódua, plantes abundants i altes). Sovint les landes no poden impedir l’erosió del sòl i es transformen en falguerars o s’esclarissen progressivament. A la muntanya mitjana l’acció humana sobre el bosc (aclarides selectives, tales, repoblament, etc.) afavoreix la presència de la pineda de pi roig. A part d’aquests boscos secundaris, el pi roig fa també pinedes primàries força esteses, que dibuixen una sanefa a mig vessant (entre els 1300 i els 1400 m i entre els 1600 i els 1700 m) a molts indrets dels Pirineus, des del Ripollès fins a l’Alta Ribagorça, i que més al sud reapareixen a les muntanyes de Prades, als ports de Beseit i, més enllà encara, a Penyagolosa.
Pineda de pi roig.
Distribució de la vegetació segons l’orientació (solell o obac) a la Val d’Aran.
a) Verneda.
b) Roureda de roure pènol.
c) Roureda de roure de fulla gran.
d) Fageda.
e) Bosc de pi roig.
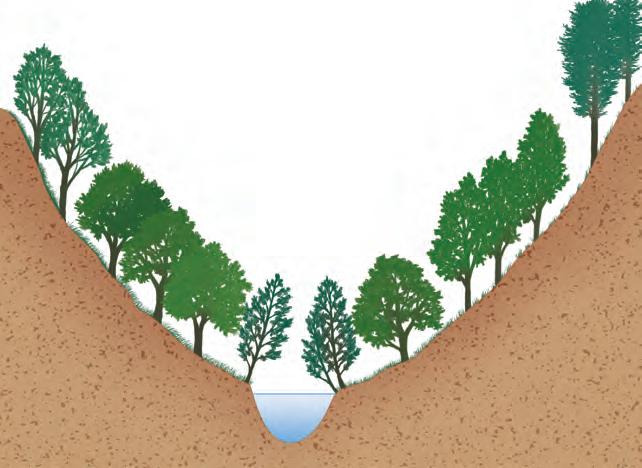
3.1. Torna a llegir la narració de la pàgina 74 sobre la colonització de l’illa de Krakatau després de l’explosió i contesta a les preguntes següents:
a) La primera aranya que hi van trobar, devia sobreviure? Per què?
b) Justifica per què les espècies pioneres desapareixien amb el pas del temps si al principi estaven prou adaptades per sobreviure.
c) Digues si el nombre d’espècies tendirà a aturar-se en unes quantitats similars a les que hi ha en altres illes igual de grans que l’illa de Krakatau. Raona la resposta.
3.2. Amb relació a l’illa de Krakatau, consulta les dades de la taula de la pàgina 74 i respon a les preguntes següents:
a) Suposant que el nombre d’espècies de mamífers i aus d’una fauna determinada fos similar abans de l’explosió, quina explicació justificaria les diferències de les xifres de la taula?
b) Quina explicació dónes al fet que els nombres de mol·luscos terrestres i d’anèl·lids siguin tan baixos?
c) Quines espècies d’animals són les més representades en els anys 1908, 1921 i 1933? Com expliques aquestes xifres?
d) Per què el nombre de rèptils presents a l’illa després de l’explosió és tan baix?
e) Des del 1908 fins al 1921 el nombre d’aus va créixer més del doble, en canvi des del 1921 fins al 1933 només va augmentar de 36 exemplars a 41. El nombre d’espècies de fanerògames censades, en canvi, no va parar d’augmentar. Quina interpretació se’n pot fer?
3.3. Respon a les preguntes següents:
a) Si es vol destinar una superfície a l’obtenció de fusta, és més rendible plantar-hi alzines o eucaliptus?
b) Què tardarà més a recuperar-se d’un incendi, una pineda o un alzinar? Explica’n els motius.
3.4. Sovint se sent a dir que els viatgers que van als tròpics estan exposats a més paràsits que a les zones temperades. Per què?
3.5. Suposa que un insecticida que mata una quantitat determinada d’insectes perjudicials per a l’agricultura mata també la mateixa quantitat d’uns altres insectes, predadors dels primers i que, per tant, contribuïen a controlar-ne la població.
a) Quedaran en equilibri les dues espècies?
b) Alguna de les dues espècies sortirà beneficiada de la nova situació? Raona la resposta.
3.6. Defineix clímax, espècie oportunista, estratègia K i successió ecològica.
3.7. Després d’haver consultat les paraules que no coneixes, copia aquest text i completa’n els espais buits amb les paraules següents: K, clímax, successió, perenne, ràpid, foc, R, agrada.
A la taigà, poblada de coníferes, que són vegetals pirofítics, el … provoca sovint una nova … secundària. Malauradament, l’assoliment del … que representa un bosc de pícea ben constituït tarda uns 500 anys. En els primers estadis d’aquest llarg procés, apareixen espècies a qui … la llum, com ara gramínies o falgueres heliòfiles. Alguns bedolls que rebroten són de creixement …, com correspon a espècies d’estratègia … . Passats 60 anys, el pi roig anirà substituint-los, ja que són arbres de fulla … . A la pineda de pi roig és on, finalment, es restablirà el bosc original, amb espècies d’estratègia … .
3.8. En un aquari s’ha fet créixer una població d’un organisme A al qual s’anava subministrant aliment. A la novena setmana s’ha introduït un nou organisme B a l’aquari. Observa el gràfic del costat, que mostra les variacions al llarg del temps de la població, i contesta a les qüestions següents:
a) Explica les modificacions de la població de l’organisme A durant les nou primeres setmanes.
b) Raona quina és la relació interespecífica més probable entre l’organisme A i l’organisme B i comenta els canvis en el nombre d’individus de cada població al llarg del temps.
c) Suposa que a partir de la cinquena setmana es deixi de subministrar aliment. Dibuixa un nou gràfic que representi les variacions del nombre d’individus de la població A durant les vuit primeres setmanes.
d) En l’aquari representat en el gràfic només hi ha dues espècies, però a la natura normalment no és així. Si es mantenen relacions interespecífiques amb nombroses espècies, els gràfics de població tindran aquesta forma?
3.9. A la taula del costat tens els valors, mesurats al migdia, d’oxigen dissolt (mil·ligrams d’oxigen per litre d’aigua) a diferents fondàries d’una bassa amb abundància de plàncton.
a) Representa les dades en un gràfic. Explica el procés biològic que predomina al migdia en el primer mig metre de la bassa i digues quins organismes el realitzen.
b) Quins canvis, en general, creus que hi pot haver pel que fa a la concentració d’oxigen a l’aigua al vespre? Raona la resposta.
c) Explica per què al fons de la bassa hi ha la concentració d’oxigen que indica la taula. Digues quins són els organismes que hi abunden més, a quin regne pertanyen i quin tipus de metabolisme tenen.
1. Arbre caducifoli amant de les boirades i dels sòls humits.
2. Arbre perennifoli amant de les humitats mitjanes i dels sòls àcids.
3. Arbust gran amant de la sequedat i dels sòls bàsics.
4. Arbust amant de les boirades, indiferent al substrat.
5. Arbust amant de les humitats mitjanes, indiferent al substrat.
6. Herba amant de la sequedat, indiferent al substrat.
d) Raona quina influència pot tenir una variació important de temperatura entre el dia i la nit en la concentració de l’oxigen del fons.
e) Consulta com varia la solubilitat d’un gas en un líquid en funció de la temperatura i raona què succeeix en les basses de zones tropicals on, a més, les nits no són fredes. És casual que els peixos pulmonats siguin propis dels tròpics? Per què?
3.10. El dibuix que hi ha al peu de la pàgina representa el perfil del vessant d’una muntanya on s’identifiquen sis espècies (1, 2, 3, 4, 5i 6) i tres comunitats vegetals (A, B i C ). Observa’l amb atenció i contesta a les preguntes següents:
a) Quines són les variables ambientals principals que condicionen la presència i la distribució d’aquestes comunitats? Explica què vol dir que en aquest vessant un arbust és indiferent al substrat.
b) Suposa que el límit de tolerància pel que fa a les necessitats d’aigua de l’arbust gran número 3sigui de 350 a 700 mm/any. Per què aquest arbust no creix en la comunitat B ? Suposa que l’arbre número 1 sigui indiferent al tipus de sòl. Dóna una hipòtesi que expliqui el fet que aquest arbre no formi part de la comunitat C
c) Explica què és una població i identifica les poblacions vegetals que hi ha a la comunitat B.
d) Suposa que a la comunitat B hi ha conills i guineus. Els conills s’alimenten fonamentalment de la planta número 5. Justifica per què una disminució en el nombre de guineus pot afavorir la planta número 6.
e) Quina relació interespecífica hi ha entre les plantes 5i 6?
f) Si el perfil del dibuix fos el de la muntanya mitjana, quins podrien ser els arbres representats? Esmenta algunes plantes indiferents al sòl i algunes de les que, en aquests ambients, prefereixen els sòls silici o calcari.
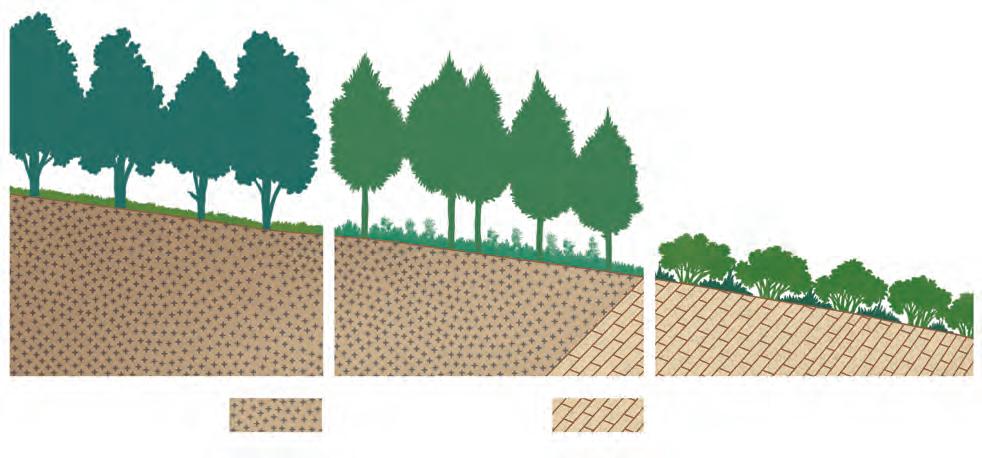
02468 1210141618
02468 1210141618
3.11. Els gràfics de dalt mostren els resultats d’un experiment amb tres cultius diferents: un tub d’assaig amb Paramecium aurelia (A), un tub d’assaig amb Paramecium caudatum (B ) i un tub d’assaig amb ambdós organismes junts (C ). Contesta a les preguntes següents:
a) Quina de les dues espècies té un creixement més ràpid?Quina de les dues espècies aprofita millor l’aliment disponible? Per què les corbes dels gràfics A i B s’aplaten?
b) Quan el cultiu és mixt (gràfic C ), quin és el resultat? Quina relació interespecífica s’estableix?
c) Quina era aquesta relació quan Gauze cultivava Paramecium bursaria i Paramecium caudatum junts? Per què? I quan cultivava junts Paramecium aurelia i Glaucoma scintillans?
d) Què passarà si en el cultiu mixt de Paramecium aurelia i Paramecium caudatum (gràfic C ) s’acumulen, a partir del desè dia, les restes metabòliques de Paramecium aurelia?
e) Dibuixa les corbes de la hipòtesi anterior i digues quina mena de relació interespecífica és la que té lloc ara.
f) Si les espècies Paramecium aurelia i Paramecium caudatum es trobessin juntes en un hàbitat natural, els resultats serien els mateixos que els de l’experiment? Per què?
3.12. El mapa del costat il·lustra els límits tradicionals del cultiu de la vinya i l’olivera a Catalunya.
a) Quin és el factor o factors que condicionen aquesta distribució? Per què? Amb relació als factors climàtics, què es pot dir d’aquestes plantes?
b) Es pot dir que es tracta de cultius mediterranis?
c) Quins països europeus utilitzen aquests productes en la cuina i en l’alimentació? Quins no els han usat tradicionalment? Amb quins productes els han substituïts?
Cultiu C
Paramecium aurelia
(per
Paramecium caudatum
02468 1210141618
Límit de l’olivera
Límit de la vinya
3.13. Llegeix aquest text, esbrina el significat de les paraules que no coneixes i contesta a les preguntes que hi ha a continuació:
Les marees roges poden tenir conseqüències severes […]. [Algunes d’aquestes algues] segreguen una toxina que s’acumula fàcilment als òrgans dels bivalves (per exemple els musclos o les ostres) que filtren el plàncton. Com que la toxina és termostable, els mol·luscos que n’han acumulat continuen sent tòxics fins i tot després de la cocció. Per això cal evitar menjar musclos, ostres o altres mol·luscos filtradors agafats després d’una marea roja, ja que poden produir intoxicacions més o menys greus. Els musclos, de roca o cultivats, es depuren deixant-los filtrar en aigua de mar lliure de toxines, en instal·lacions especials.
a) Què volen dir els mots toxina i termostable?
b) Per què s’acumula la toxina en els musclos i en les ostres? Té alguna relació amb la seva manera d’alimentar-se?
c) Quins són els aliments que es poden consumir si hi ha marea roja? I els que no es poden consumir, quins són? En cas de marea roja, en resultarà afectat un peix que s’alimenti de les algues del bentos?
d) És cert que un cop passada la marea roja ja es poden consumir els musclos i les ostres? Per què?
e) Per evitar ensurts, abans de ser posat a la venda el marisc es tracta en una planta depuradora. En què consisteixen aquestes plantes?
f) Menjar ostres que hagin estat afectades per una marea roja pot resultar perillós, ja que se solen menjar crues. Però és cert que amb els musclos no hi ha possibilitat d’intoxicar-nos, ja que es mengen bullits o fets al vapor? Per què?
3.14. Defineix els conceptes següents: màquia, garriga, alzinar, verneda, brolla i timoneda
3.15. Representa gràficament les etapes de la degradació de la vegetació en la terra baixa mediterrània i en la muntanya mitjana.
3.16. Llegeix el text següent, extret d’una enciclopèdia d’ecologia, i després posa uns quants exemples de geòfits.
S’anomenen geòfits les plantes que viuen més d’un any i passen l’època desfavorable enterrades en el sòl. Els geòfits, que són molt abundants en els climes àrids i desèrtics, també estan molt ben representats en altres indrets que presenten alternança d’estacions.
3.17. Llegeix el text següent i contesta a les preguntes que hi ha a continuació:
Vegetació mediterrània i vegetació eurosiberiana
[A la regió eurosiberiana] les plantes prosperen amb una ufana extraordinària. Com que les temperatures són acceptables i d’aigua n’hi ha a desdir, la vegetació pren una gran puixança. Els vegetals caducifolis, exuberants i alegres, hi troben el seu òptim. Per això el paisatge vegetal eurosiberià és tan ric en matisos: les branques despullades i aparentment mortes a l’hivern, el reverdiment primaveral […]. La regió eurosiberiana ocupa sobretot el centre d’Europa […].
A l’anomenada regió mediterrània les condicions ambientals són ben diferents. De neu quasi que no cal ni parlar-ne perquè, a més de no fer-hi fred, les precipitacions són escasses. Les temperatures són més aviat elevades i els eixuts estivals, prolongats i rigorosos. L’aigua, en general, escasseja.
A la regió mediterrània les plantes no poden permetre’s grans dispendis: res de perdre la fulla, tan treballosament desenvolupada, res d’exuberàncies innecessàries. La gràcia és mantenir-se durant tot l’any, a l’estiu fent front a l’eixut –i mirant d’esquivar l’incendi–, la resta de l’any refent-se. Vegetals perennifolis i de fulla més aviat petita i dura hi predominaran, doncs.
RAMON FOLCH, Comprendre la natura
a) A quines característiques físiques estan adaptades les plantes pròpies de les regió eurosiberiana?
b) A quines característiques físiques estan adaptades les plantes pròpies de les regió mediterrània?
c) Digues quins dels arbres següents són característics de la vegetació eurosiberiana i quins, de la mediterrània: alzina, avet, roure, surera, pi negre i pi roig.
d) Ordena tots els arbres esmentats a la pregunta anterior d’acord amb l’altitud màxima en què es presenten en la vegetació de Catalunya.
3.18. Relaciona cada terme del primer grup amb la definició corresponent del segon grup.
Primer grup: bentos, bioma, clímax, taigà.
Segon grup: conjunt de plantes i animals que viuen sobre el fons marí o d’aigües dolces; bioma propi de la regió eurosiberiana septentrional; etapa final de la successió ecològica; comunitat clímax corresponent a una determinada àrea geogràfica.
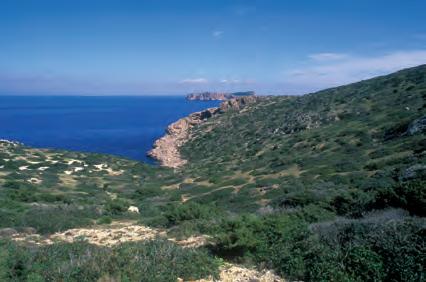
Paisatge de l’illa de Cabrera, amb la vegetació característica de la regió mediterrània, en aquest cas màquia i garriga, adaptada els estius eixuts.
Hi ha una circulació contínua –provocada en última instància per l’energia solar– dels bioelements per la biosfera, l’atmosfera, la hidrosfera i la litosfera. En això consisteixen els denominats cicles biogeoquímics
Els canvis estudiats en els ecosistemes al llarg del temps també estan molt relacionats amb els canvis dels seus elements i de les seves substàncies químiques. Al nostre planeta pràcticament no hi ha entrades ni sortides de materials de l’espai exterior, a diferència del que passa amb l’energia, que entra i surt contínuament. Sempre es reutilitzen els mateixos elements químics, de manera que el seu itinerari recomença una vegada i una altra, i es forma un cicle que anomenem cicle biogeoquímic.
Veurem a continuació quins són els cicles més importants que cal conèixer per comprendre la globalitat de la biosfera. Els valors de cadascuna de les substàncies que intervenen en els cicles són tan grans que és difícil fer-se una idea de la quantitat que representen. Convé comparar les quantitats i no fixar-se tant en els valors absoluts, i així s’entendrà millor en quin moment del cicle es poden modificar més ràpidament, cosa que també ajuda a avaluar els efectes de l’activitat humana.
El cicle del carboni està molt lligat a la vida, ja que les plantes en prenen en forma de CO2 de l’atmosfera i el converteixen en matèria orgànica amb la fotosíntesi. En respirar, els organismes converteixen de nou el carboni en CO2.
El coneixement del cicle és molt important per entendre els riscos inherents al denominat efecte d’hivernacle, que consisteix en l’escalfament de la superfície terrestre a causa de l’emmagatzematge d’energia calorífica (alguns gasos de l’atmosfera, com ara el vapor d’aigua o el
Fotosíntesi (105)
Plantes (742)
CO2 atmosfèric (673)
Respiració (32)
Herbívors (7)
Matèria orgànica morta
El cicle del carboni. Les xifres d’emmagatzematge i de transferències anuals es donen en 1015 grams.
CO2 i HCO3 –en els oceans (38200)
CaCO3 en roques sedimentàries (62200000) (66) (66)
Consumidors
Carbó i petroli (3230000)
Respiració (73)
Combustió
CO2, actuen igual que els vidres d’un hivernacle; deixen passar la radiació solar i retenen la radiació infraroja irradiada per la Terra).
S’ha dit, parlant metafòricament, que els dipòsits de carboni en roques són enormes, però que només les engrunes circulen per l’atmosfera. Per això és tan delicada qualsevol actuació humana que mobilitzi proporcionalment les grans reserves de carboni en forma de carbó i petroli, ja que la petita fracció atmosfèrica de CO2 es modificaria amb molta facilitat i el clima quedaria alterat.
Al nostre planeta, a causa de l’activitat biològica, hi ha molt poc CO2 a l’atmosfera –només 340 ppm (parts per milió)–, a diferència d’altres planetes, com ara Venus o Mart, on el CO2 representa més del 90% de l’atmosfera. Les quantitats de carboni que circulen s’equilibren bàsicament mitjançant la fotosíntesi i la respiració dels éssers vius, ja que el CO2 que es forma per oxidació directa dels minerals que, com el grafit, contenen carboni és escàs, de l’ordre del 0,1%. Cada any, prop d’un 20% del carboni de l’atmosfera es transforma en matèria orgànica a causa de la fotosíntesi: de l’ordre de 1017 g de C als continents i 4 · 1016 g de C al mar. Unes quantitats similars retornen a l’atmosfera per la respiració. Si en la nostra latitud les plantes no fan la fotosíntesi més activament, és perquè el factor limitador generalment és el CO2, no pas la llum. Un altre aspecte important és que el mar és el principal regulador de la concentració atmosfèrica de CO2, ja que conté una quantitat de CO2 dissolt cinquanta vegades superior a la que hi ha a l’atmosfera, i, per tant, és també el principal regulador del clima futur.
Finalment, una altra part del carboni s’aparta del cicle quan precipita en forma de carbonats insolubles per formar petxines, roques, etc. Aquestes reserves de carboni, molt més grans que les de carbó i petroli, no són combustibles, i la humanitat no les modifica tant.
El nitrogen forma part dels éssers vius, i es troba principalment en les proteïnes i en els àcids nucleics. Malgrat l’abundància i la importància del nitrogen a la biosfera, a banda d’alguns bacteris, la resta d’éssers vius no el poden aprofitar en forma de N2, ja que la molècula de N2 és molt estable. Només a temperatures molt altes, per exemple als llamps, es formen òxids de nitrogen. Alguns bacteris, com ara els Rhizobium, fixen el nitrogen a ió amoni a temperatura baixa gràcies als seus enzims, i quan ho fan consumeixen energia.
Una vegada fixat el N2 a amoni, altres bacteris del sòl, anomenats bacteris nitrificants, passen l’amoni a nitrat (NO3) i d’aquesta manera és absorbit per les plantes, les quals, al seu torn, el traslladen als animals que les consumeixen. Els bacteris desnitrificants poden fer un procés invers i alliberar N2 o bé N2O.
L’ús creixent dels combustibles fòssils per part de les societats industrials a partir del segle XVII ha causat un increment de la concentració de CO2 a l’atmosfera, molt especialment en els darrers decennis. Aquest gas contribueix de forma decisiva a l’efecte d’hivernacle de l’atmosfera i, per tant, a l’escalfament global del planeta i al risc real del canvi climàtic (un augment de la temperatura que comporta una cadena de greus conseqüències: desertització, fosa de gels, pujada del nivell del mar…).
El cicle del nitrogen (a) i el cicle del sofre (b).
Atmosfera
4.3.
El sofre és present a la natura en forma de sulfur d’hidrogen (H2S), diòxid de sofre (SO2) i sulfats, principalment. El cicle d’aquest element travessa el sòl, les plantes i els animals. Com a conseqüència de les activitats industrials, l’espècie humana té un paper molt rellevant en aquest cicle, ja que emet a l’atmosfera més d’un milió de tones anuals de SO2, que retorna a la superfície terrestre en forma de pluja àcida, la qual perjudica els ecosistemes. Les precipitacions àcides derivades de les transformacions dels òxids de sofre –o de nitrogen– han fet malbé un percentatge important dels boscos i llacs de l’hemisferi nord.
Tempestes elèctriques Reaccions químiques N2
Desnitrificació Pluja Volcans
NH3, NO, NO2, N2O Plantes i animals
Nitrogen inorgànic en el sòl
Continents
Atmosfera
marina
Oceans
fixadors de nitrogen (simbionts i lliures)
orgànica morta
Continents
i petroli Pissarres i altres roques amb sulfurs
Matèria orgànica morta a
i animals Nitrogen inorgànic dissolt
Pèrdua en els sediments profunds
aigües volcàniques
Pous petrolífers i mines
Erupcions volcàniques
4.4. El cicle del fòsfor
El fòsfor és un element important per a la vida i forma part dels àcids nucleics i d’altres molècules, com ara el trifosfat d’adenosina (ATP). La major part del fòsfor es troba en forma de roques, que, en meteoritzar-se, l’alliberen. En el sòl, els fosfats són aprofitats per la vegetació, la qual, quan és consumida, el transfereix als consumidors. En els ecosistemes terrestres, el fòsfor és més abundant que en els ecosistemes aquàtics. Això s’explica per dues raons: la primera és que aquest element no passa des del sòl fins a l’atmosfera, i la segona és que hi ha força fosfats molt poc solubles en aigua. En el medi aquàtic, el fòsfor té tendència a desaparèixer de la zona il·luminada, ja que allí és consumit pels organismes. Quan aquests organismes moren, els seus cossos se sedimenten cap a les fondàries, i arrosseguen el fòsfor que contenen, que queda fora de l’abast dels organismes fotosintètics. Per això el fòsfor sovint és el factor limitador de la productivitat dels ecosistemes aquàtics. En zones com la costa del Sàhara o del Perú, l’aflorament d’aigües profundes riques en fòsfor permet una producció extraordinària de fitoplàncton, que comporta un augment de la pesca.
L’aigua i el mercuri són els únics minerals líquids a temperatura ambient. Els éssers vius són formats en bona part per aigua, la qual és molt important com a nutrient. A més a més, la seva circulació pels oceans i per l’atmosfera regula tot el clima del planeta, regulació que és possible gràcies a les peculiars característiques físiques de l’aigua.
Una de les característiques més remarcables és l’altíssima calor d’evaporació, que a 100 °C és de 537 calories per gram d’aigua. Això significa que per fer bullir cada gram d’aigua cal una quantitat d’energia més de cinc vegades més gran que per escalfar la mateixa quantitat de 0 a 100 °C, ja que en aquest cas només es necessiten 100 calories. Aquesta enorme quantitat d’energia que s’inverteix en bona part als tròpics per evaporar aigua torna a alliberar-se quan el vapor es condensa en altres latituds.
La calor específica de l’aigua també és elevada en comparació de la dels altres materials de la superfície terreste, l’aire i les roques. Això fa que l’aigua tingui una funció amortidora dels canvis de temperatura, cosa que explica per què a prop del mar l’amplitud tèrmica és menor que en els indrets més continentals. Aquest fet té una influència indirecta sobre l’adaptació dels éssers vius al seu entorn, però, a més, com que els éssers vius són formats majoritàriament d’aigua, no estan exposats a una variació tan extrema de la temperatura del seu cos com la que experimenta l’entorn en el qual viuen.
Les peculiars característiques de l’aigua, com les seves elevades calor específica i calor d’evaporació, fan que la seva circulació pels oceans i l’atmosfera reguli tot el clima del planeta.
Normalment es relaciona l’efecte d’hivernacle amb les emissions de CO2, però sovint s’oblida que l’aigua hi té un paper molt important.
El cicle de l’aigua. Els valors d’emmagatzematge i de transferència s’expressen entre parèntesis i cal multiplicar-los per 1018 grams i per 1018 grams per any, respectivament.
La densitat de l’aigua és màxima a 4 °C. Això significa que el gel és menys dens que l’aigua líquida, cosa que possibilita que, tant als oceans com als llacs, es geli tan sols la superfície i s’hi mantingui la vida per sota, on s’acumula l’aigua freda, més densa. La calor de fusió del gel és de 79 calories per gram; per tant, quan es forma neu, aquesta és la quantitat d’energia que se cedeix al medi ambient.
L’aigua té un paper important en l’efecte d’hivernacle, ja que el vapor d’aigua és el principal gas que captura la radiació infraroja que irradia la Terra. Sovint s’oblida aquest factor i es parla molt de l’efecte del CO2, ja que com que en bona part és d’origen antropogènic és menys difícil de limitar.
La importància de l’aigua en la regulació del clima arriba a l’extrem que sembla haver-hi una forta evidència que una alteració en els corrents marins de l’Atlàntic, causada per l’alliberament d’una enorme quantitat d’aigua dolça a l’Amèrica del Nord, podria haver estat el desencadenant de la darrera glaciació.
D’altra banda, quan es pensa en la contaminació de les reserves d’aigua dolça, cal recordar que, d’aquesta, n’hi ha molta més de subterrània que de superficial, i es renova molt més lentament. Per tant, la contaminació dels aqüífers és, malgrat que se’n parli menys, encara més greu que la dels rius.
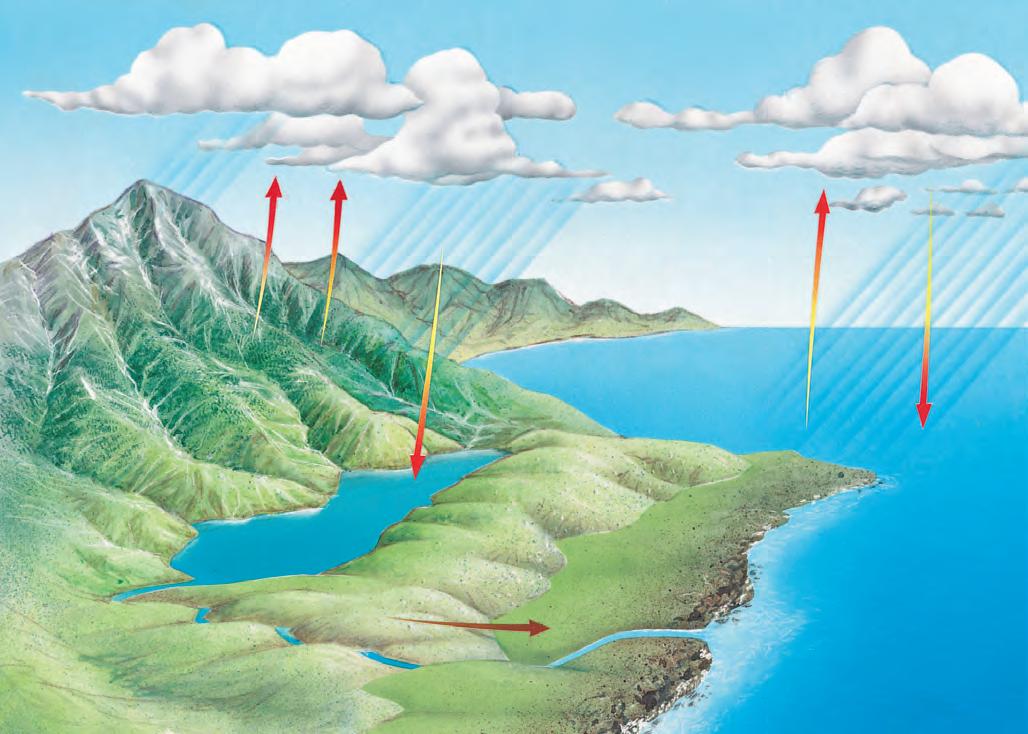
Evaporació i transpiració (59)
Moviment net de vapor d’aigua pel vent (36)
Vapor d’aigua atmosfèric (13)
Evaporació de l’aigua del mar (319)
Precipitació sobre els continents (95)
Vessament i aigua intersticial (36)
Aigua de les roques sedimentàries (210000)
Precipitació sobre el mar (283)
marina (1380000)
Els elements químics que formen el cos dels éssers vius s’utilitzen una i mil vegades cíclicament, mentre que el trànsit d’energia en l’atmosfera o en els ecosistemes és un flux que els travessa. Contràriament al que passa amb la matèria disponible per als éssers vius, que és limitada i sempre és la mateixa (i, per tant, s’haurà de reutilitzar), l’energia arriba contínuament en forma de radiació solar. La matèria i els elements químics fan cicles, però l’energia és sempre renovada, és un flux. Tota la vida a la Terra depèn del flux d’energia, que inclou processos de recepció i de degradació, com també els intercanvis que es produeixen a la hidrosfera i a l’atmosfera, i la reemissió des de la superfície terrestre. Aquest flux és unidireccional i inclou el pas d’energia lumínica a energia química (fotosíntesi), com també d’energia química a calor (respiració).
Només dos tipus d’energia són directament útils per a la vida: les radiacions d’ona relativament curta (llum) i la dels enllaços químics. Aquesta energia és la que aprofiten metabòlicament els organismes i s’anomena energia endosomàtica: ni tan sols els bacteris no aprofiten cap altra forma d’energia. Encara hi ha més limitacions per disposar d’energia endosomàtica, ja que només la radiació de longitud d’ona apropiada s’utilitza per a la fotosíntesi i es transforma en energia química dels glúcids. A més, en la fotosíntesi, en la producció primària, únicament s’aprofita una mitjana del 0,1% de l’energia solar que arriba a l’atmosfera.
En tota la xarxa tròfica els intercanvis d’energia són poc eficients. Per això els diferents pisos d’una piràmide tròfica disminueixen de mida, ja que bona part del flux d’energia es va perdent en calor, moviment, etc.
La resta d’energia és energia exosomàtica. Aquesta energia no entra en el cos dels organismes, però és molt important en el funcionament de la biosfera: escalfa la terra i l’aigua, forma núvols i provoca una circulació als oceans i a l’atmosfera que fa que el planeta sigui habitable fora dels tròpics. Com a mitjana es reben, a les zones temperades, 150 W · m–2 d’energia al llarg de l’any.
Tot el flux que l’energia segueix està emmarcat en les lleis de la termodinàmica:
a)L’energia ni es crea ni es destrueix, sinó que es transforma.
b)Cap transformació no és eficaç al 100% i la part d’energia no aprofitada apareix en forma de calor (pensem, per exemple, en l’escalfor produïda pel treball muscular).
El sol és, per als éssers vius, font d’energia.
A l’espai, l’energia viatja en forma de radiació electromagnètica. L’energia solar arriba a les capes altes de l’atmosfera terrestre en forma de radiacions de distintes longituds d’ona, les quals es consumeixen i es transformen en calor, que és una radiació d’ona llarga o infraroja. És important remarcar que els gasos principals de l’atmosfera són transparents a la radiació solar i, per aquest motiu, no s’escalfen. A una certa altitud, malgrat que hi faci molt de sol, l’aire és fred, ja que no es pot escalfar fàcilment si no és a prop del terra calent. A altituds molt elevades, es consumeix força radiació solar quan l’ozó capta els raigs ultraviolats, que són les radiacions més perilloses per a la vida.
Un terç de la radiació solar incident, aproximadament, es reflecteix en l’atmosfera, i tan sols la meitat arriba a la superfície terrestre.
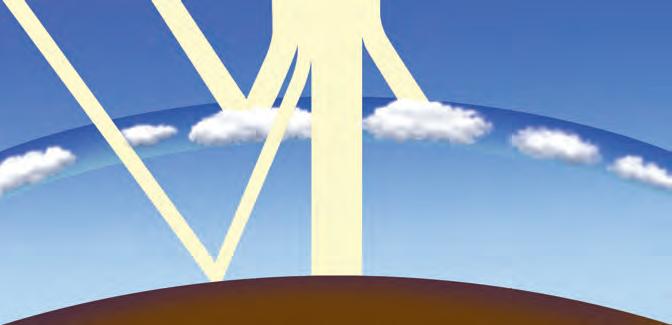
Radiació reflectida
–Per les partícules suspeses en l’aire:
–Pels núvols:
–Directament per la superfície terrestre; per tant, no en forma d’infraroig:
de radiació reflectida:
Radiació absorbida abans d’arribar a la terra
–Per l’aigua atmosfèrica, excloent-ne els núvols:
–Pels núvols:
–Per l’ozó (O3):
–Per les partícules suspeses en l’aire:
Total de radiació absorbida abans d’arribar a la Terra:
Radiació absorbida pel sòl
–Per la Terra (superfície terrestre i oceans):
–(De les 51 parts, 23 havien estat emprades per formar núvols
–calor latent– i la resta, per escalfar el sòl.)
Total de radiació absorbida pel sòl:
La radiació que arriba al mar es distribueix, gràcies a les onades, en els primers 100 metres de profunditat. Aquest fet, juntament amb l’alta calor específica de l’aigua, fa que a la superfície marina la diferència de temperatura entre el dia i la nit sigui més petita que a la superfície terrestre.
Un altre factor important que influeix sobre el clima terrestre i la circulació atmosfèrica general és l’albedo (la reflectivitat) del planeta. L’albedo és un valor que oscil·la entre 0 per a un cos negre i 1 per a un cos ideal del tot reflector. La cendra volcànica o la pols de les roques, per exemple, tenen una albedo molt baixa, d’un 7%. Això significa que el 93% de les calories incidents són absorbides i, per tant, aquests cossos s’escalfen molt.
En canvi, l’albedo dels núvols, d’un 70%, és gairebé tan alta com la de la neu, que és d’un 80%. L’albedo de l’aigua en estat sòlid és molt més alta que la de l’aigua en estat líquid, cosa que col·labora a impedir que s’escalfi el planeta. Els oceans, amb una albedo força baixa (entre el 5% i el 10%), capten gairebé tota l’energia que reben del sol, l’emmagatzemen i la redistribueixen. En comparació, els deserts tenen una albedo que se situa entre el 15% i el 31%, i els boscos, entre el 6% i el 20%.
En definitiva, tota l’energia rebuda pel planeta ha de tornar a l’espai, de manera que la Terra mantingui més o menys estable la seva temperatura. Aquesta devolució, que té lloc des dels núvols i els gasos atmosfèrics i des de la superfície terrestre, es fa en forma de radiació infraroja, és a dir, de calor. Una vegada escalfada, la superfície terrestre emet radiacions infraroges que són parcialment retingudes per alguns gasos de l’atmosfera (vapor d’aigua, CO2, CH4, CFC), els quals fan augmentar uns 20 °C la mitjana de la temperatura terrestre i possibiliten la vida a la Terra.
L’albedo representa el quocient entre la radiació solar que és reflectida per una superfície i la radiació solar que hi incideix. Ens indica la reflectivitat de la superfície en qüestió.
Una part important de l’energia que arriba a la Terra es reflecteix en les superfícies d’albedo alta.
3.19. El fòsfor forma compostos sovint insolubles. Creus que aquesta característica fa que sigui un factor limitador en els ecosistemes terrestres i en els aquàtics? Raona la resposta.
3.20. L’ambient de nitrogen molecular es fa servir sovint per conservar els aliments envasats. Consulta el cicle del nitrogen i explica’n el perquè.
3.21. Les activitats humanes alliberen carboni de les reserves on aquest element està dipositat en grans quantitats i des de fa molt temps. Quines són aquestes activitats?
3.22. La desertització, pot refredar el nostre planeta? Per què?
3.23. Esbrina si augmentarà o disminuirà la solubilitat del CO2 dissolt a l’oceà en cas que la temperatura planetària augmenti. Quines conseqüències tindria aquest fet?
3.24. L’ús d’energies alternatives és un repte de futur. Algunes d’aquestes energies, com ara l’energia solar, són netes i, per tant, menys contaminants. A més, l’aprofitament de l’energia solar no té risc d’esgotar els recursos disponibles, com sí que ho pot fer el consum dels combustibles fòssils.
Amb l’activitat industrial (a la fotografia, central termoelèctrica de Cercs, al Berguedà), cada anyl’atmosfera rep més d’un milió de tones de CO2
Ara bé, l’aprofitament de l’energia solar fotovoltaica (és a dir, l’energia elèctrica obtinguda a partir de l’energia solar), té, ara com ara, un rendiment molt baix. Per tal que es pugui generalitzar el seu consum se n’haurà de millorar molt l’eficiència, encara. El problema que et plantegem t’ajudarà a entendre-ho.
En termes generals, es pot afirmar que, en el nostre país, en un domicili particular es consumeixen uns 600 kWh en dos mesos. Continuant amb la generalització, es pot afirmar que l’energia solar que arriba a la Terra és anualment –a les zones temperades– d’uns 150 W/m2
Tenint en compte que l’eficiència de les plaques solars fotovoltaiques per generar electricitat a partir de la radiació solar és del 5%, calcula la superfície mínima que hauria de tenir una placa solar per garantir la producció dels 600 kWh cada dos mesos.
3.25. Quina de les frases que hi ha a continuació il·lustra millor el concepte de successió ecològica? Raona la resposta.
a) Un paràsit s’alimenta del seu hostatger més gros, sense matar-lo.
b) A la bassa de reg on l’any passat només hi havia aigua tèrbola ara hi ha granotes i algues.
c) Augmenta el consum d’aliments manipulats genèticament.
d) Hi ha menys lleons que nyus i zebres.
3.26. L’orangutan és una espècie en perill d’extinció. Esbrina quina relació té aquest fet amb el tipus d’ecosistema on habiten aquests primats i resol les qüestions següents:
a) Aquests animals, poden sobreviure en les primeres fases de la successió de la vegetació? Quines en són les causes?
b) Debat amb els teus companys i companyes si es tracta d’animals d’estratègia R o K.
c) Quina és l’estratègia demogràfica d’aquestes espècies?
d) Explica si l’estratègia R o K d’una espècie té alguna relació amb el risc d’extinció.
3.27. Interpreta què succeeix al llarg del temps en les dues poblacions representades en els gràfics A i B. Explica-ho mitjançant una hipòtesi. Digues també què creus que passarà en un futur.
3.28. Fixa’t en el gràfic C, que mostra l’evolució anual d’un sistema aquàtic, i contesta a les preguntes que hi ha a continuació:
a) Per què la concentració de nutrients i la de fitoplàncton es modifiquen de manera gairebé simultània?
b) Fixa’t en l’abundància de zooplàncton. Estableix una hipòtesi que justifiqui aquesta abundància. Com posaries a prova la hipòtesi?
c) L’estiu és una època poc productiva. Mira de buscar-ne l’explicació.
3.29. El descobriment de contaminants bioacumulables, com per exemple les dioxines, és sempre un fet preocupant.
a) Busca informació i digues si les dioxines afecten tots els nivells tròfics de la mateixa manera. Raona la resposta i posa’n exemples.
d’individus (centenars)
Nombre d’individus (centenars)
(anys)
Temps (anys)
d’organismes Concentració de nutrients
b) Quins organismes resultarien més afectats per aquests contaminants en ecosistemes com ara l’Àrtic o Doñana? Això és preocupant per a la salut?
3.30. Els bacteris fixen el N2 a temperatures baixes. Les indústries han de fer-ho a temperatures i pressions molt altes.
a) Què usen els bacteris, a diferència de les indústries, per fixar el N2?
b) Quina importància tindria per a l’agricultura que plantes com ara el blat o l’arròs tinguessin bacteris simbionts capaços de fixar nitrogen? Caldria produir els mateixos adobs que actualment? Ajudarien a millorar el medi ambient? Per què?
c) Busca informació sobre com es faria realitat el que es planteja a la pregunta anterior i relaciona-ho amb l’anomenada enginyeria genètica.
3.31. Explica per què la Terra es refredaria de manera imparable si la proporció nevada de la superfície terrestre superés un cert llindar. Utilitza les paraules albedo i retroalimentació en la teva explicació.
3.32. Respon a les preguntes següents:
a) Com expliques que només la meitat de la radiació solar incident arribi a escalfar la superfície de la Terra?
b) Com s’escalfa la troposfera? Per on ho fa?
c) Per què fa més fred als cims de les muntanyes que a les valls?
3.33. Resol les qüestions següents:
a) Defineix terra baixa, muntanya mitjana i alta muntanya. Quins són els seus límits respectius?
b) Esbrina si els organismes següents són autòctons de Catalunya: alzina, castanyer, roure, marmota, ós, silur. En cas que no ho siguin, mira d’esbrinar quan s’hi han introduït. En quins ambients es troben?
3.34. El mar és el que regula el CO2 atmosfèric i, per tant, el clima del futur. Per evidenciar la facilitat amb què el CO2 es dissol a l’aigua en comparació de l’oxigen o el nitrogen, fes l’experiment següent:
Agafa una espelma d’uns 5 cm de llarg, un plat fondo ple d’aigua i un got. A continuació, fixa l’espelma al centre del plat, encén-la i posa-hi el got al damunt i de cap per avall.
En tapar amb el got l’espelma encesa, la combustió s’esgotarà per manca d’oxigen. Observa que l’aigua puja dins el got, la qual cosa indica que a l’interior la pressió és més baixa. Què ha passat? Si contestes a les preguntes següents et serà més fàcil esbrinar-ho:
a) L’oxigen s’ha consumit? Què se n’ha fet?
b) Per què la pressió interior és més baixa? Hi ha hagut una fuita de gas? On?
c) Relaciona aquest fenomen amb el paper del mar en el cicle del carboni.
3.35. Encara que tinguéssim aigua per beure, sense la circulació de l’aigua el nostre planeta seria molt diferent i ben poc habitable. Un important ecòleg va dir la frase següent: «Vistes les característiques de l’aigua, algú es pot sorprendre que siguin així? És com admirar-se que els rius passin per les grans ciutats.»
Digues quines són aquestes característiques que té l’aigua i que són tan importants per a la vida a la Terra.
3.36. Visita el web del Departament de Medi Ambient de la Generalitat de Catalunya (hi pots accedir entrant al web www.espaibarcanova.cat) i consulta-hi les dades que fan referència als incendis forestals.
Amb relació al gràfic de la pàgina 77, explica quines són les actuacions negligents i els tipus d’accidents que han originat incendis en zones arbrades en els darrers anys.
1. Observa i estudia aquests mapes del relleu i la vegetació del Principat d’Andorra, situat al bell mig dels Pirineus, i contesta a les preguntes que hi ha a continuació:
(Per fer aquesta activitat et pot ser útil copiar de manera superposada els dos mapes. En un paper vegetal calca primerament el mapa de relleu amb tots els pobles i rius i posa-hi els noms, però no el pintis. Després, al damunt, copia-hi els límits de la vegetació i pinta’ls.)
a) Quins tipus de vegetació es poden trobar a Andorra? Què determina la distribució de la vegetació a les valls d’Andorra?
b) Com pots veure en el mapa, el país andorrà és limítrof amb França i amb quatre comarques catalanes. Quina vegetació hi ha en aquestes cinc zones
frontereres? Es tracta –en cada cas– de terra baixa, muntanya mitjana o alta muntanya?
c) Quina és la vegetació pròpia de la rodalia dels principals nuclis de població del Principat, Sant Julià de Lòria, Andorra la Vella i les Escaldes?
d) Si fem una excursió des d’Andorra la Vella fins al Pas de la Casa, quins tipus de vegetació veurem?
e) Quina és, al Principat d’Andorra, la vegetació pròpia d’un indret situat a 1000 m d’altitud? I a 1300 m? I a1900 m? I a 2500 m?
f) A les muntayes andorranes és abundant el boix. Però només es troba en indrets determinats: en unes valls hi abunda i en altres no n’hi ha, és comú en uns rodals i, en canvi, uns quants metres més enllà no se’n troba. Quina és la causa d’aquest fenomen?
On es fa el boix? N
2. Copia aquests textos sobre la successió ecològica i escull en cada cas l’alternativa correcta:
Les espècies (oportunistes / especialistes) són característiques de l’inici de la successió. Són espècies de vida (llarga / curta) que tenen una reproducció (ràpida / lenta).
A mesura que la successió avança, la biomassa (augmenta / disminueix) i el quocient entre la producció primària de l’ecosistema i la biomassa es fa (més gran / més petit).
En avançar la successió, la renovació de tots els elements de l’ecosistema serà més (lenta / ràpida). El flux d’energia es tornarà cada vegada més (ràpid
/ lent) per la longitud (més gran / més petita) de les cadenes tròfiques. Simultàniament, el nombre d’espècies diferents (augmenta / disminueix).
Un ecosistema prop del clímax té una diversitat (més reduïda / més àmplia). Les espècies que gestionen amb la màxima eficiència l’energia disponible en un ecosistema es troben (a l’inici / al final) de la successió. Les espècies que hi viuen a l’inici de la successió són generalment d’estratègia (R/K). Un ecosistema madur és (més / menys) complex.
En la situació climàcica, la producció primària d’un ecosistema és (més petita / igual / més gran) que la respiració; per tant, el creixement de la biomassa del conjunt és (positiu / nul).
3. Llegeix el text següent i constesta a les preguntes que hi ha a continuació:
La cadena geoquímica de la multiplicació s’expressa per mitjà del ritme dels processos químics terrestres. […] La intensitat amb què es multipliquen els organismes repercuteix en la intensitat amb què es formen els sediments.
La pel·lícula de plàncton és la zona principal d’on es desprèn l’oxigen lliure, producte vital dels organismes verds, on es concentren els compostos de nitrogen, que tenen un paper crucial en la química d’aquest element, i és el centre on s’elaboren els compostos orgànics de l’aigua oceànica. Diverses vegades a l’any, el calci s’acumula sota forma de carbonats i el silici, en forma d’òpals; ambdós acaben per dipositar-se com una capa, al fons. Els resultats d’aquest treball poden observar-se en les grosses capes de roques sedimentàries, en la part orgànica de les roques calcàries (algues microscòpiques, foraminífers) i en els jaciments silicis (diatomees, esponges, radiolaris).
VLADIMIR I. VERNADSKY, La biosfera
a)Per què és important l’obra de Vladimir I. Vernadsky?
b)Què vol dir que el plàncton és una pel·lícula?
c)Quins cicles biogeoquímics s’esmenten implícitament o explícitament en el text?
d)Per què és tan important el nitrogen per als organismes?
e)En forma de quins compostos s’acumula el calci al fons?
f)Quins organismes contenen calci en el seu esquelet?
g)Quins organismes contenen silici en el seu esquelet?
h)Fes una recerca bibliogràfica i contesta a les preguntes següents:
–Quines roques sedimentàries d’origen orgànic contenen calci? Quins són els organismes que s’hi han acumulat?
–Quines roques sedimentàries d’origen orgànic contenen silici? Quins són els organismes que s’hi han acumulat?
Es proposa una sortida de camp per estudiar un alzinar (el medi natural més pròxim per a la majoria de centres). Si la visita coincideix amb una escola de natura, se’n poden aprofitar els materials, els itineraris, les activitats prèviament preparades i les visites monitoritzades.
Objectius
a) Aplicació de manera pràctica dels coneixements adquirits amb relació als ecosistemes.
b) Identificació d’alguns dels vegetals més comuns i estudi de la morfologia.
c) Ús de claus i sistemes de classificació dels organismes.
d) Estudi microscòpic d’algunes plantes i animals.
e) Dibuix del natural: tant si ets un artista com si no, dibuixar és una de les millors maneres d’estudiar la natura, ja que obliga a fixar-s’hi.
Material Camp
Lupa de mà; llapis i quadern; flascons i bosses per recollir mostres; premsa per a plantes, amb fulls de paper absorbent.
Laboratori
Microscopi, lupa binocular; micròtom de mà i navalla histològica; safates de plàstic, cristal·litzadors i vasos de precipitats o similar; pinces, llancetes, tisores i agulles amb mànec; comptagotes; blau de metilè; roig neutre; les mostres preses en la sortida de camp.
a) L’estructura de l’alzinar
L’alzinar és el bosc més típic de la regió mediterrània. Cada planta hi ocupa un lloc determinat. Per ajudar-te a comprendre l’alzinar, et serviran les guies de camp –llibres on es descriuen les espècies de plantes i animals– i sobretot les de F. Masclans (Guia per a conèixer els arbres i Guia per a conèixer els arbusts i les lianes, que també pots trobar en suport CD-ROM) i l’«Herbari» (3 vol.) de la Història Natural dels Països Catalans.
Per fer les observacions de laboratori, caldrà agafar mostres sempre d’acord amb les instruccions del professor o la professora, per tal de no malmetre res que no hagi de servir per a l’estudi i per evitar de ferir les espècies protegides o en perill.
1. Fes un esquema de l’estructura de l’alzinar i descriu-ne els estrats o pisos (arbori, arbustiu i herbaci) i les plantes enfiladisses.
2. Observa la morfologia de l’alzina, descriu-la i dibuixa’n la fulla, la flor i el fruit.
3. Assigna cadascuna de les plantes següents a l’estrat corresponent i fesne una descripció botànica:
4. Afegeix a la llista anterior aquelles plantes que, tot i no figurar-hi, són abundants a l’alzinar que has visitat.
5. Confecciona un herbari. Agafa mostres de plantes per a l’estudi posterior i guarda-les ben planes a la carpeta –entre dos fulls de paper–acompanyades en cada cas d’una etiqueta amb les dades de la planta (nom, procedència, data). Un cop a la classe, posa-hi un pes al damunt per tal de premsar-les i canvia els papers cada dia, mentre encara no estiguin ben seques.
(I) Els pins
6. És molt probable que en el bosc que has visitat hi hagi pins. Amb l’ajuda d’aquesta taula identifica de quines espècies són.
Fulles reunides de tres en tres
Fulles reunides de dues en dues:
–Arbre robust amb la capçada arrodonida en forma de paraigua; pinyes grosses i pesants (10-15 cm × 7-10 cm); pinyons comestibles; escorça grisa rogenca profundament clivellada
–Arbre molt o poc robust però amb la capçada no arrodonida en forma de paraigua; pinyes còniques i pinyons no comestibles:
–Fulles de 3 a 6 cm de longitud:
–Fulles de color verd blau; l’escorça té una tonalitat rogenca; pinyes mats amb les esquames poc prominents
–Fulles de color verd molt fosc; escorça de color gris fosc; pinyes lluents amb les esquames del costat que mira al sol molt prominents (clarament asimètriques)
–Fulles de 6 a 20 cm de longitud:
–Fulles primes i poc robustes, d’entre 6 i 10 cm de longitud; pinyes molt abundants, petites (8-10cm × 3-5cm), que formen un angle agut amb la branca, respecte de la qual estan inclinades cap avall; esquames de la pinya quasi planes
–Fulles gruixudes i robustes, punxegudes, que depassen els 10cm; superfície de les esquames sortint:
–Pinyes petites (4-8cm × 2-4cm) perpendiculars a la branca
–Pinyes grosses (10-18 cm × 5-7 cm), inserides obliquament a la branca i inclinades cap avall
Pi insigne (Pinus radiata)
Pi pinyer (Pinus pinea)
Pi roig (Pinus sylvestris)
Pi negre (Pinus mugo ssp. uncinata)
Pi blanc (Pinus halepensis)
Pinassa (Pinus clusiana)
Pinastre (Pinus pinaster)
(II) Plantes enfiladisses
Fixa’t en les plantes que s’enfilen sobre les altres.
7. Amb l’ajut de la taula d’aquesta pàgina, identifica les plantes enfiladisses que hagis trobat.
Clau per a la determinació de les principals lianes i plantes enfiladisses de l’alzinar
–Planta de fulla composta............. 2
–Planta de fulla simple.............. 4
–Planta amb agullons forts i abundants a la tija...... Esbarzer (Rubus ulmifolius)
–Planta sense agullons a la tija........... 3
–Folíols de la fulla composta amb la vora dentada..... Vidalba (Clematis vitalba)
–Folíols de la fulla composta amb la vora no dentada.... Vidiella (Clematis flammula)
–Fulles molt primes, aciculars (en forma d’agulla), disposades en grups de 5 a 12........... Esparreguera (Asparagus officinalis)
–Fulles no aciculars, de limbe laminar......... 5
–Fulles disposades en verticils (que neixen al mateix nivell en la tija). De cada nus, en surten 4-6 fulles..... Roja (Rubia tinctoria)
–Fulles no disposades en verticils.......... 6
–Fulles oposades, de dues en dues.......... Lligabosc (Lonicera implexa)
–Fulles no oposades............... 7
–Fulles en forma de cor a la base i amb espines petites a la vora............... Arítjol (Smilax aspera)
–Fulles amb la nerviació palmada (com la palma de la mà), amb 3-5 lòbuls de forma triangular....... Heura (Hedera helix)
8. Descriu les estratègies que fan servir les plantes enfiladisses.
c) Les criptògames
Són les plantes sense flors: molses i falgueres.
9. Agafa mostres d’algunes molses i guarda-les en bosses de plàstic perquè no s’assequin.
10. Amb l’ajut de la taula de la pàgina següent, identifica les falgueres de l’alzinar que has visitat i agafa’n mostres, seguint les instruccions de l’activitat 5.
–Falguera amb pecíol ramificat
–Falguera amb pecíol no ramificat.
–Fronda amb el revers ple d’esquames que li confereixen un color daurat.
–Frondes amb poques esquames o sense.
–Frondes en forma de ventall.
–Frondes de forma diferent.
–Fronda simplement lobulada.
–Fronda netament dividida.
–Fronda dividida una sola vegada.
–Fronda dividida dues o més vegades.
–Pecíol amb esquames marronoses
–Pecíol sense esquames
Mesos Arran deterra A 50cm
Gener 3 7,7
Febrer
Març
Abril
Maig
Juny
Juliol
Agost
Setembre Octubre Novembre Desembre 3
Falguera comuna (Pteridium aquilinum)
2
Dauradella (Ceterach officinarum)
3
Capil·lera (Adiantum capillus-veneris)
4
Polipodi (Polypodium vulgare)
5
Falzilla roja (Asplenium trichomanes)
6
Polístic setífer (Polystichum setiferum)
Falzilla negra (Asplenium adiantum-nigrum)
d) Les adaptacions
11. Després d’haver estudiat les plantes i els animals de l’alzinar, fes una relació de les adaptacions (a la llum, a la temperatura, a la humitat…) que hi has observat.
12. Si cada dia a la mateixa hora del matí mesuressis la temperatura de l’alzinar arran de terra, d’una banda, i a 50 cm de profunditat, de l’altra, trobaries unes dades mitjanes molt similars a les de la taula que tens al costat.
Fes els gràfics corresponents de la variació de la temperatura i, a continuació, contesta a les preguntes següents:
a) Quina informació es desprèn de les dades recollides en la taula del costat?
b) Amb relació a la vida animal i vegetal, quines conclusions en treus?
c) Els animals de sang freda de l’alzinar, poden mantenir-se actius durant l’hivern?
d) Enterrar-se dins el sòl, creus que és una bona manera de protegir-se del fred o de la calor? Per què? Coneixes algun animal que ho faci? Quin?
e) Les relacions tròfiques
13. Escriu exemples de cadenes tròfiques en què participin alguns dels organismes que has tingut ocasió d’observar.
14. Fes una relació de tots els exemples de simbiosi, comensalisme, mutualisme, forèsia, epibiosi i parasitisme que has tingut ocasió d’observar.
15. Explica els exemples de mecanismes de defensa que has observat en animals i plantes (estructura, forma, color, etc.).
f) Biogeografia
Entre els animals i vegetals estudiats hi ha abundants exemples de zoocòria, hidrocòria i anemocòria.
16. Fes una relació dels fenòmens biogeogràfics que has observat.
g) L’acció humana
L’alzinar que has visitat, com que no està aïllat, està constantment sotmès a les influències humanes.
17. Quines són aquestes influències? Quines conseqüències tenen?
h) Recollida i preparació de mostres
18. Agafa les mostres següents, sempre d’una manera respectuosa amb l’entorn.
a) Algunes fulles tendres de les principals plantes estudiades. Guarda-les en bosses de plàstic perquè no s’assequin.
b) Algunes flors. Guarda-les en bosses de plàstic perquè no s’assequin.
c) Petits fragments de molses.
d) Algunes mostres de líquens.
e) Fulles seques del sòl. Un cop al laboratori, posa-les en remull amb aigua sense clor (de manantial o deixada reposar en un recipient de boca ampla i destapat) per fer-ne un cultiu d’infusoris.
f) Mostres d’aigua i d’algues d’algun safareig o curs d’aigua; un cop al laboratori procedeix com en el punt anterior.
g) Si la visita és a la tardor o a la primavera, alguns fruits de gavarrera (roser silvestre) de color vermell.
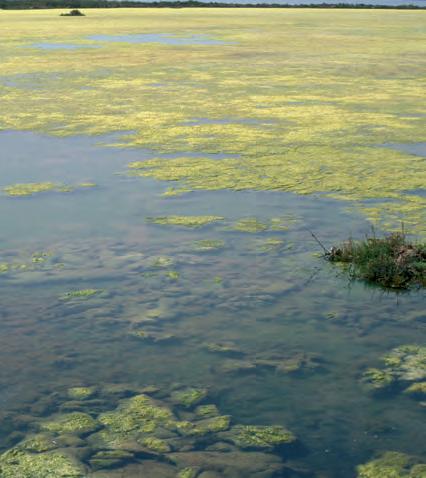
a) Campaneta
b) Aranya
c) Caputxina
d) Lli
e) Jonc
f) Malva
g) Botó d’or
h) Pi
a) Col
b) Seneci
c) Cactus
d) Orella de rata
e) Mare-selva
f) Boca de dragó
g) Ortiga
h) Clavell
i) Crisantem
j) Tortellatge
k) Heura
l) Herba de la ràbia
m) Trepó
i)Activitats de laboratori
19. Observa amb la lupa binocular les flors recollides, identifica-les amb l’ajuda del professor o la professora i fes-ne un diagrama indicant els tipus i els nombres de peces florals.
20. Arrenca, amb l’ajuda de les pinces i les tisores, una miqueta de la pell (epidermis) d’un pètal i posa’l, amb una goteta d’aigua, entre el portaobjectes i el cobreobjectes. Mira’l al microscopi i digues com són les cèl·lules epitelials i els estomes. Dibuixa’ls.
21. Empolsina, amb els estams d’una flor, un portaobjectes, posa-hi una gota d’aigua i cobreix-lo amb un cobreobjectes. Mira la preparació al microscopi i digues quina forma té i com és. A quin dels grans de pol·len dibuixats s’assembla? Quina grandària aproximada té?
22. Raspa, amb una llanceta, el revers de les fulles recollides sobre diferents portaobjectes, posa-hi una gota d’aigua i cobreix-lo amb un cobreobjectes. Mira la preparació al microscopi i hi veuràs pèls o tricomes. Digues com són i dibuixa’ls. S’assemblen a alguns dels que hi ha al dibuix?
23. Observa amb la lupa binocular les mostres de molsa. Mira d’identificar-hi les parts que es veuen a la il·lustració d’aquesta pàgina. Amb l’ajut d’un llibre de botànica, esbrina la funció de cada part i fes un dibuix del cicle biològic de la molsa.
24. Agafa un trosset de molsa i posa-la amb una gota d’aigua entre el portaobjectes i el cobreobjectes. Mira-la al microscopi i hi veuràs les cèl·lules i, en el seu interior, els cloroplasts. Dibuixa’ls. Conserva aquestapreparació i afegeix-hi unes gotes d’aigua, si cal, per evitar que s’assequi.
25. Pren el micròtom de mà, posahi un tros de fulla tendra (de pastanaga, per exemple) entre dos blocs de tall i, amb la navalla histològica, fes-ne làmines ben primes. Escull les millors làmines, posa-les sobre un portaobjectes i tenyeix-lo amb un parell de gotes de roig neutre (dissolt a l’1/10000). Mira la preparació al microscopi i digues quins teixits hi veus. Com són les cèllules? Com estan disposades?
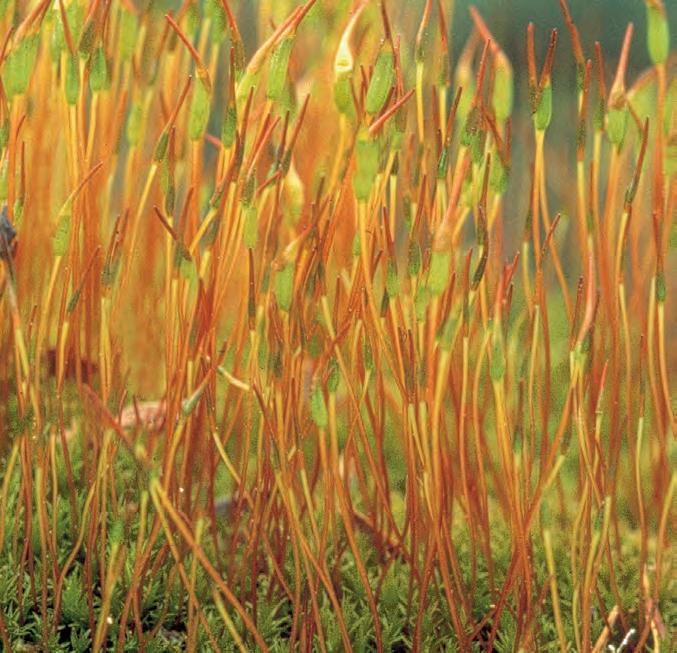
26. Damunt d’un portaobjectes posa-hi una mica del pericarp (polpa vermellosa) del fruit del roser silvestre desfet amb una mica d’aigua. Mira-ho al microscopi i hi veuràs els cromatòfors. Digues què són i com són.
27. La natura és un cúmul de microcosmos i una fulleta de molsa és com un ecosistema. Reprèn la preparació de l’activitat 25, posa-la al microscopi i mira-la. Podràs observar que amb l’aigua s’han revifat un bon nombre de petits animalons que hi viuen. Descriu com són i què fan. Amb l’ajuda de les guies de camp, i del professor o la professora, identifica’n tants com puguis.
28. Observa els líquens amb la lupa binocular i dibuixa’ls. Es poden distingir els límits de l’alga i del fong? És habitual això en una simbiosi? Per què? Amb l’ajuda d’una guia de camp, mira d’identificar algunes de les parts del liquen.
29. Raspa, amb una llanceta, els sorus (conjunt d’esporangis) del revers d’una fronda de falguera sobre un portaobjectes. Cobreix la preparació amb un cobreobjectes i mira-la al microscopi. Hi veuràs els esporangis i, en el seu interior, les espores. Dibuixa els esporangis i descriu-los. Després, posa-hi una gota d’aigua i torna a mirar la preparació. Probablement, el contacte amb l’aigua ha permès que algun esporangi s’obrís i en sortissin les espores. Torna a dibuixar el que veus.
Els esporogonis (les càpsules que s’aprecien a la il·lustració) contenen les espores de les molses.
30. Amb l’ajuda d’una guia de camp, fes un dibuix del cicle biològic de les falgueres.
31. Agafa, amb un comptagotes, unes gotes del cultiu d’infusoris de l’apartat e de l’activitat 18. Diposita-les sobre un portaobjectes, cobreix-les amb un cobreobjectes i mira les preparacions al microscopi. Identifica alguns dels animalons que s’hi veuen. Per tal d’alentir els moviments dels éssers vius i poder-ne observar millor les estructures, pots tenyir algunes d’aquestes preparacions amb una gota de blau de metilè.
32. Fes el mateix amb les mostres d’aigua de l’apartat f de l’activitat 18.
33. Si en la sortida vas poder recollir algues, mira-les al microscopi amb una gota d’aigua entre el portaobjectes i el cobreobjectes. Et serà fàcil distingir-hi els límits de les cèl·lules, el nucli i els cloroplastos. Identifica cada alga segons la forma dels cloroplasts.
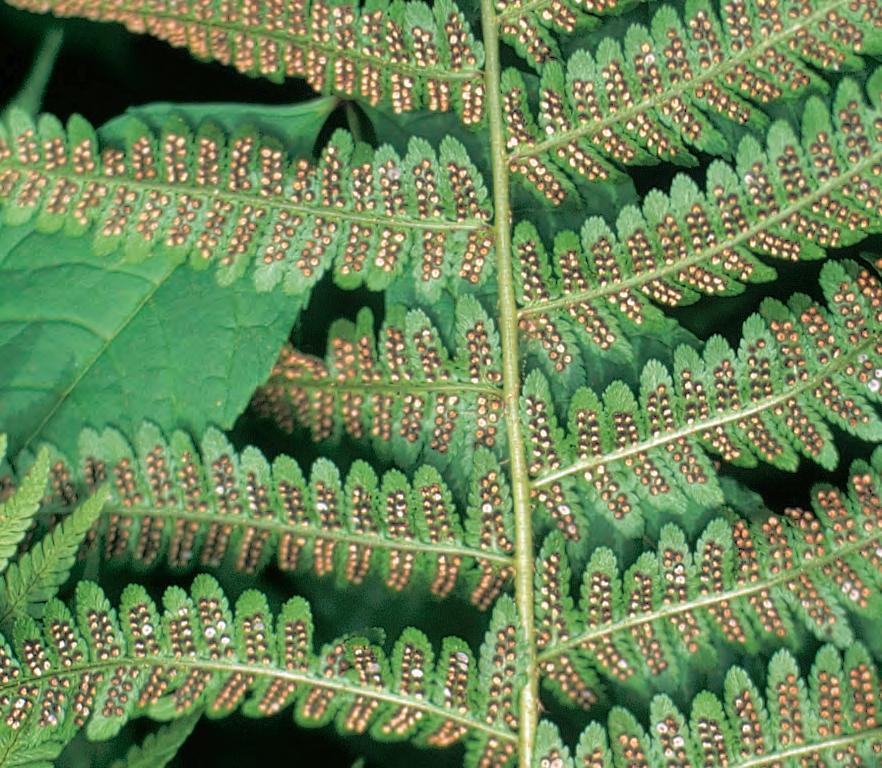
Esquema
1.L’ésser humà i la distribució de les espècies
2.La biologia i l’economia. La producció d’aliments
La ramaderia és l’activitat humana consistent en l’explotació d’animals per obtenir-ne aliment i productes derivats o serveis.
L’ésser humà exerceix actualment una influència decisiva sobre la biosfera, de la qual forma part. L’augment excessiu de la població i l’activitat industrial plantegen greus problemes arreu del planeta, com ara la destrucció del sòl i la desforestació, el canvi climàtic, l’alteració de la capa d’ozó, la pluja àcida, etc. A més, la capacitat tecnològica actual permet d’escometre grans obres que, sovint, si no se n’avaluen prou les conseqüències i si no s’estableixen mesures correctores, generen un gran impacte ambiental. També cal tenir present que els coneixements científics i tècnics fan dels éssers humans actuals els gestors, no sempre responsables, de la vida i del patrimoni genètic de les altres espècies biològiques.
Qui es prendrà la pena de produir compostos químics, si ho pot fer un microbi?
JOHN B. S. HALDANE, Noves tendències en genètica (1941)
Actualment, l’espècie humana és el principal factor de dispersió dels éssers vius. En alguns casos, com ara el dels animals d’interès ramader i el de les plantes cultivades o ornamentals, la intencionalitat de dispersió és clara, però molt sovint la introducció d’espècies noves per part de l’ésser humà és accidental. A grans trets, aquesta acció humana condueix cap a l’homogeneïtzació de la fauna i la flora, i a la uniformització dels cultius: el cafè de Colòmbia i del Brasil és originari de l’Àfrica oriental; el te cultivat a l’Índia i al sud-est asiàtic prové de la Xina; les patates procedeixen de l’Amèrica del Sud, etc.
L’ésser humà ha afavorit –volgudament o no– la dispersió d’algunes espècies, les quals han ampliat, en conseqüència, la seva distribució; però també n’ha fet desaparèixer d’altres que no han suportat l’arribada de les noves. L’espècie humana és una part molt petita de la biosfera i, en canvi, hi exerceix un imperialisme ecològic fruit del seu predomini sobre les altres espècies. En el transcurs dels darrers segles, la capacitat tecnològica de l’ésser humà i la seva política colonitzadora han permès que el bestiar, els paràsits, les males herbes o els conreus propis de la vida europea s’estenguessin arreu.
Els ecosistemes que han estat molt de temps aïllats, per exemple, els de les illes, sovint suporten molt malament la introducció d’espècies noves. Com que les espècies noves no hi troben competidors naturals, es reprodueixen amb facilitat i arriben a ser tan nombroses que, al final, es converteixen en un problema. La majoria de les plagues agrícoles més greus han estat causades per espècies importades gairebé sempre involuntàriament, com ara l’escarabat de la patata o la papallona dels geranis.
N’hi ha prou amb alguns exemples per copsar la magnitud del fenomen: mosques domèstiques, puces, pardals i rates són animals avui dia cosmopolites gràcies a l’ésser humà. També entre les plantes hi ha exemples d’espècies que s’han estès per mitjà de llavors portades inadvertidament, com ara el plantatge de fulla estreta europeu (Plantago lanceolata), que es fa a les vores dels camins i que els indis de l’Amèrica del Nord anomenaven «peu anglès», perquè havien après que la seva presència estava lligada a la dels colonitzadors, o, a Catalunya, el raïm de moro (Phytolacca americana), que s’ha estès recentment pels rodals de les viles i els marges dels conreus.
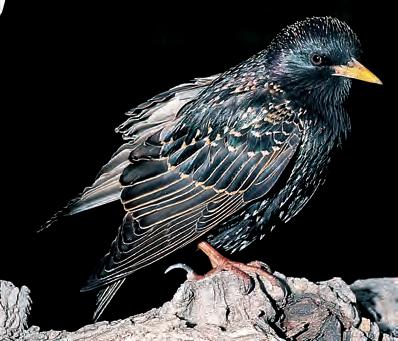
Expansió de l’àrea de distribució de l’estornell comú europeu als Estats Units d’Amèrica.
L’ésser humà ha introduït voluntàriament alguns animals, especialment els domèstics, amb resultats sovint catastròfics. Porcs i cabres han ocasionat amb freqüència la ruïna de la vegetació local i, en conseqüència, la de la resta d’habitants. Així, per exemple, quan en el segle XVI es van introduir els ases a l’illa canària de Fuerteventura, es van multiplicar tant i van incidir tant sobre la vegetació que els habitants de l’illa van estar a punt d’abandonar-la.
La intensitat de les comunicacions actuals afavoreix aquests processos, ja que els ports, els aeroports i les estacions ferroviàries són vies d’entrada òptimes per a les noves espècies. A vegades la progressió de les espècies introduïdes és molt ràpida. És el cas de l’estornell europeu i de la formiga argentina. L’any 1891 es van alliberar al Central Park de Nova York un centenar d’estornells comuns que fins aleshores no havien habitat aquell continent, i cinquanta anys després ja poblaven gairebé tota l’Amèrica del Nord.
La petita Linepithema humilis (abans dita Iridomyrmex humilis)és una formiga argentina la presència de la qual es va detectar a Nova Orleans l’any 1891, i entre el 1905 i el 1910 a Califòrnia, Ciutat del Cap, Madeira, Portugal i Xile. L’any 1920 va arribar a la costa lígur (al nord d’Itàlia) i el 1936, a Nàpols (al sud d’Itàlia). Entre els anys 1940 i 1950 va ser localitzada a Austràlia i a les illes Hawaii. L’any 1953 se’n detectà la presència a Mallorca i, al cap d’un temps, a Menorca. Des de fa uns quants anys, la trobem arreu de la península Ibèrica.
L’acció biogeogràfica de l’ésser humà es resumeix en els trets següents:
– Reducció de l’àrea de dispersió de moltes espècies, que queden reduïdes a endemismes d’acció humana (per exemple el bisó americà, els ocells de presa, etc.) o abocades a l’extinció (moltes vegades com a conseqüència de la introducció d’espècies foranes).
– Uniformització dels principals cultius, que s’han mundialitzat o, si més no, s’han expandit en àrees que no eren les originals.
– Introducció de forma involuntària de moltes espècies per mitjà dels transports.
– Obertura de passos i eliminació de barreres.
– Inducció involuntària, però freqüent, de catàstrofes naturals com a conseqüència de la introducció accidental d’espècies que, un cop instal·lades en nous territoris en els quals no tenen depredadors ni paràsits naturals, s’expandeixen d’una manera extraordinària i ocasionen plagues i flagells.
Si bé quan una espècie entra en contacte amb un ecosistema nou normalment no ho té gens fàcil per sobreviure-hi, sovint passa, com acabem de veure, que com que no hi té enemics naturals, prolifera de manera explosiva fins al punt de convertir-se en una plaga, bé perquè produeix malalties o bé perquè malmet els cultius i els productes emmagatzemats.
Això és el que va passar amb la dorífora, o escarabat de la patata, i amb els conills a Austràlia. La primera espècie va ser introduïda a Europa al final del segle XIX amb un carregament de patates procedent de l’Amèrica del Nord. Pel que fa als conills a Austràlia, l’any 1874 van introduir-n’hi vint-iquatre exemplars, els quals, al cap de pocs anys, ja s’havien convertit en centenars de milions que destruïen les collites i el medi natural.
L’explosió demogràfica d’aquestes poblacions es pot explicar per l’absència, en el nou hàbitat, de paràsits i depredadors de l’espècie introduïda. Aleshores, s’intenten combatre aquests flagells amb la lluita biològica, és a dir, amb la importació d’aquelles espècies que en el medi d’origen parasiten o depreden les espècies causants dels problemes. Això resulta més assenyat que una acció química indiscriminada per destruir l’espècie causant de la plaga, ja que aquesta solució danyaria també altres espècies i contaminaria el medi.
Una altra possibilitat és combinar la lluita biològica amb l’ús selectiu d’insecticides o altres productes químics, els quals, per anar bé, haurien de ser efectius només sobre l’espècie causant de la plaga i innocus per a la resta d’espècies. Aquesta estratègia s’anomena lluita integrada. Així, per exemple, l’escarabat lluent (Calosoma sycophanta), que es menja les larves de molts insectes, s’utilitza per combatre algunes plagues, com ara la de l’eruga peluda del suro.
De totes maneres, l’equilibri ecològic és un procés molt complex i sovint la introducció de paràsits i, sobretot, de depredadors té, a mitjà o llarg termini, conseqüències imprevistes perquè afecta altres espècies.
Les activitats humanes amb una influència més gran sobre l’extinció de les espècies són la sobreexplotació directa, la caça i la pesca, la destrucció d’hàbitats i de rutes, la urbanització i el comerç de fauna i flora.
1.2. L’extinció d’espècies
L’impacte de l’activitat humana sobre la natura posa en perill la biodiversitat, és a dir, la varietat d’organismes (plantes, animals, microorganismes) considerada a tots els nivells. En realitat, desconeixem encara bona part de la biodiversitat que hi ha. En qualsevol cas, l’amenaça a la biodiversitat és molt greu, perquè la natura és el rebost, la farmaciola, el magatzem i el dipòsit de combustible de la humanitat. Es calcula que només un 2% de les espècies biològiques han estat adequadament estudiades pel que fa al seu valor per a la humanitat en el domini de la medicina, l’agricultura o la indústria.
L’extinció és la desaparició d’una espècie biològica. Mentre que en el passat moltes espècies s’han extingit sense la intervenció humana, avui dia desenes de milers d’espècies biològiques estan amenaçades d’extinció per raons que sovint tenen a veure amb l’activitat humana. De fet, l’extinció és un fenomen natural que sempre ha existit. Al llarg del passat, s’han extingit moltíssimes més espècies de les que viuen actualment. El que ha canviat amb la intervenció dels éssers humans és el ritme d’extinció de les espècies.
Les principals activitats humanes que influeixen en l’extinció de les espècies són la sobreexplotació directa de les poblacions animals per mitjà de la caça i la pesca; la destrucció d’hàbitats i de rutes migratòries a conseqüència de la tala i l’estassada d’àrees verges, la urbanització, les obres públiques, etc., i l’activitat comercial directa dels animals (tràfic d’espècies exòtiques) o d’alguns dels seus productes (pells, marfil, etc.).
Si continua l’estat de coses actual, abans del final del segle XXI hauran desaparegut més de la meitat de les espècies actualment vives. Només de mamífers, en els darrers 2000 anys se n’han extingit més de 100 espècies, de les quals les dues terceres parts han desaparegut a partir
Extincions de mamífers i ocells causades per l’ésser humà Ocells Mamífers
Nombre d’espècies extingides des del 1600
Nombre d’espècies en perill d’extinció
Percentatge relatiu de les causes que han produït les extincions i de les que actualment amenacen les espècies en perill d’extinció
Ocells Mamífers
Caça i eliminació directa
Desnaturalització de la fauna
Destrucció de l’hàbitat
de la segona meitat del segle XIX, com a conseqüència immediata de la pressió demogràfica i la industrialització. En el mateix període de temps, s’ha extingit el 20% de les aus, principalment com a conseqüència de l’ocupació humana d’illes. De les 9000 espècies actuals, una mica més de 1000 estan en perill d’extinció. La industrialització i l’ús de pesticides posen en perill els insectes i altres invertebrats en una proporció que als països europeus es calcula entre el 15% i el 35% del total d’espècies.
L’any 1990, la selva tropical de tot el món, un dels exemples més destacats de l’acció humana sobre la natura, s’havia vist reduïda a vuit milions de quilòmetres quadrats, menys de la meitat de l’extensió que tenia a l’època prehistòrica. La taxa de destrucció actual, que dobla la de deu anys enrere, és d’uns 140000 km2 per any (prop d’un 2% del total).
Alguns dels vertebrats ibèrics amenaçats o en greu perill d’extinció són l’àguila imperial, l’àguila pescadora, la cabra hispana, el camaleó, la cigonya negra, el duc, la foca mediterrània, la fotja banyuda, el gat mesquer, la gavina corsa, el linx, la llúdriga, l’ós bru i el trencalòs. Però aquestes espècies, que són les més conegudes, constitueixen només la punta de l’iceberg d’un problema global molt greu.
A partir del segle XIX, la pressió humana sobre la biosfera comporta un ritme d’extinció d’espècies molt accelerat i sense precedents. Per aconseguir capgirar aquesta situació, són imprescindibles tant l’acció individual de cadascun de nosaltres com els acords polítics internacionals i els plans d’acció d’àmbit mundial, com ara el conveni internacional CITES, de l’any 1973, que tracta d’aturar els perills que el tràfic i el comerç incontrolat de la fauna i la flora representen per a la preservació dels animals i les plantes. Aquest és un tema molt important, del qual tots hem de ser conscients.
Amb poc més de 100 anys d’antiguitat, els parcs nacionals s’han convertit en elements clau de la política conservacionista. Efectivament, des de la creació del Parc Nacional de Yellowstone, als Estats Units d’Amèrica, en el segle XIX, s’han anat creant àrees protegides en molts països dels cinc continents.
Aquell primer parc nacional es va fundar l’any 1872 com a conseqüència de l’impuls de l’advocat i explorador Cornelius Hedges, el qual, de tornada d’una expedició oficial al territori de Wyoming, va proposar al Congrés dels Estats Units de preservar Yellowstone com a parc al servei de tota la nació. «Em sembla que Déu va fer aquesta regió perquè tothom en gaudeixi per sempre més», va argumentar davant del Congrés del seu país. Ben aviat van començar a sorgir arreu actuacions similars. El Royal National Park, que es troba a Austràlia, data de 1879, i el parc Tangarino, situat a Nova Zelanda, de 1884. El parc
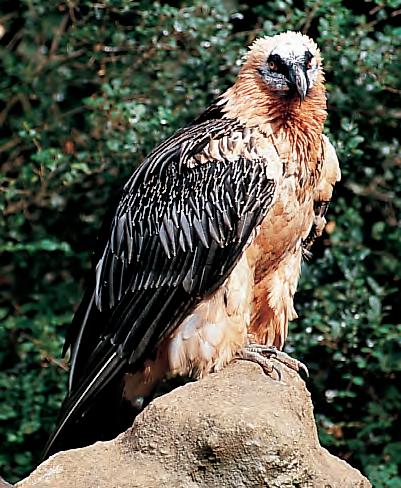
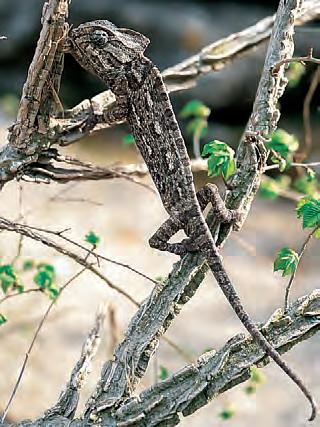
El primer parc nacional, el de Yellowstone, va ser creat l’any 1872 a l’estat de Wyoming, als Estats Units d’Amèrica. Els primers parcs naturals espanyols (el dels Picos de Europa i el d’Ordesa i Mont Perdut) daten de 1918.
nacional més gran, amb una extensió de 70 milions d’hectàrees és a Groenlàndia.
Creats originàriament per a la preservació de la natura i per a l’esbargiment (dues idees que cada vegada és més difícil de fer compatibles, atesa l’afluència massiva de gent en aquests espais), els parcs nacionals, d’acord amb els criteris establerts per la Unió Mundial per a la Conservació de la Naturalesa, són àrees protegides en les quals no està permesa ni la caça ni l’extracció de recursos naturals. De segur que els parcs haurien de ser més nombrosos i més grans. Amb tot, algunes de les zones més emblemàtiques dels cinc continents (Serengueti o muntanyes Virunga, a l’Àfrica; Yosemite o les Galápagos, a Amèrica; la badia de Shark, a Austràlia) són parcs nacionals que preserven hàbitats per a centenars d’espècies cada vegada més arraconades.
Una de les nombroses cascades del Parc Nacional de Yellowstone, als Estats Units d’Amèrica.
S’anomenen reserva de la biosfera, concepte creat l’any 1971, determinades àrees de protecció on es preveu la presència de l’activitat humana. Formen una xarxa internacional d’espais protegits en què s’intenta aplicar un concepte integrat de conservació de la biodiversitat que sigui compatible amb el desenvolupament econòmic i la formació dels seus habitants.
La fil·loxera
La fil·loxera és un petit insecte que xucla la saba dels ceps i ocasiona la mort de la planta. És originària d’Amèrica, on causa danys poc importants a la vinya americana, però el 1863 s’introduí a Anglaterra, i dos anys més tard al continent europeu. A partir d’aquell moment avançà d’una forma imparable i, allà on arribava, ocasionava la mort de les vinyes. En el mapa pots apreciar les dates d’arribada de la fil·loxera a les diferents terres catalanes. Sense cap dubte, la fil·loxera ha constituït un dels factors naturals negatius més importants de canvi de l’economia agrícola del país. Moltes zones en van quedar afectades i es van despoblar. Actualment, tots els ceps plantats són de vinya americana (resistent a la fil·loxera) empeltats de vinya europea (productora del raïm adequat), però moltes vinyes arrasades en aquella època ja no han tornat a ser plantades.
La crisi que suposà la fil·loxera per a l’economia catalana la podem veure reflectida en aquest fragment de la novel·la L’hereu Noradell, escrita el 1889.
«El primer eixam fil·loxèric, en envair les arrels i fer-hi, amb les seves picades, una ferida, produïa una sagnia favorable. El primer any d’invasió fil·loxèrica mai no s’havien vist tants raïms. Però aquesta benèfica sagnia, quan és repetida, es torna ferida mortal. Per això, l’any següent la vinya, cansada de lluitar, dessagnada i anèmica, ja no pot resistir més.
–Dolenta malura hauran agafat! Totes les vinyes del terme són així.
–Vol dir, Francesc, que eixa malura és la fil·loxera?
–Així ho diuen: el senyor Mateu, d’Espolla, em féu veure l’altre dia una arrel amb el microscopi, que n’era rublerta. Pocs dies després [l’autoritat] feia arrencar i xeringar a alta dosi de sulfur de carboni els ceps per matarlos més aviat. Quin dol! Quina tristor els pagesos! Les vinyes, el principal rèdit del patrimoni, s’anaven a morir víctimes de la fil·loxera! Les vinyes del patrimoni Noradell, com les de tota aquella comarca, feien llàstima de mirar. Les fulles de les vinyes que els altres anys tenien un verd fosc, senyal de vigor i de vida, prenien unes tintes verd groguenc. La taca fil·loxèrica es distingia de molt lluny, formava un rotllo de color desmaiat. En veure l’extensió de ceps morts, per la planura i serralades, i en recordar la seva vigorosa ufana, un se sent pres de tristesa i de recança. El pobre menestral entreveu el trist futur, la negra misèria que l’obligarà a expatriar-se, ell i sa família. Aquell any el patrimoni Noradell, que donava abans de la fil·loxera més de dos mil hectolitres de vi, donà tot just cinquanta litres.»
CARLES BOSCHDELA TRINXERIA,
L’hereu Noradell(text adaptat)
Els pugons són insectes homòpters.
Cronologia de l’arribada de la fil·loxera.
Prada de Conflent (1878)
Urgellet (1890)
Urgell, la Segarra i Pallars (1900)
Bages (1892)
Penedès i
Vallès Maresme (1883)
Sant Andreu de Palomar (1886)
Sant Quirc de Colera (1879) Empordà (1880)
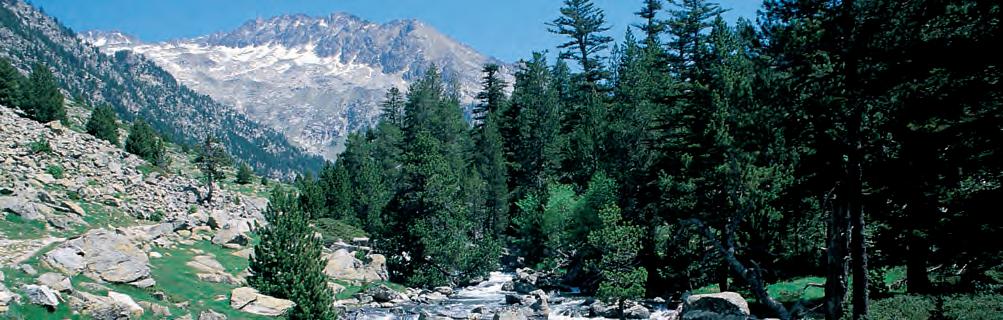
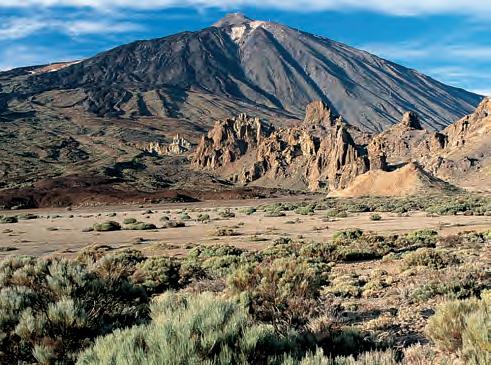
Paisatges del Parc Nacional d’Aigüestortes i Estany de Sant Maurici (a dalt) i del Parc Nacional del Teide (a baix).
Els primers parcs naturals espanyols, Covadonga i Ordesa, daten de 1918; dos anys abans s’havia promulgat la primera llei espanyola sobre la matèria. Amb tot, es pot considerar el 1969 com la data clau de la política proteccionista oficial a Espanya. Aquell any es va declarar parc nacional l’enclavament de Doñana, a Andalusia. Va ser necessari promulgar algunes lleis específiques per prohibir les explotacions agropecuàries i la dels aqüífers dins del perímetre del parc. A partir d’aquell moment, l’Estat, i posteriorment també les comunitats autònomes, ha seguit una política de promulgació de lleis de protecció d’espais naturals i de conservació de la flora i la fauna silvestres. A Espanya hi ha actualment catorze parcs nacionals. En ordre d’extensió, són els següents: el Parc Nacional de Sierra Nevada (86208 hectàrees al sud-est d’Andalusia); el Parc Nacional dels Picos de Europa (64660 hectàrees, a cavall entre Astúries, Cantàbria i la província de Lleó); el Parc Nacional de Doñana (54252 hectàrees, gairebé totalment a la província de Huelva, excepte una petita porció situada a les províncies de Cadis i Sevilla); el Parc Nacional de Cabañeros (40856 hectàrees, a les províncies de Ciudad Real i Toledo); el Parc d’Aigüestortes i Estany de Sant Maurici (26733 hectàrees, al Pirineu lleidatà); el Parc Nacional del Teide (18990 hectàrees, a l’illa canària de Tenerife); el Parc Nacional de Monfragüe (al nord d’Extremadura, amb 18396 hectàrees); el Parc Nacional d’Ordesa i Mont Perdut (15608 hectàrees, al Pirineu d’Osca); el Parc Nacional de l’arxipèlag de Cabrera (10021 hectàrees –de les quals 1318 són terrestres– a l’arxipèlag de Cabrera, a les illes Balears); el Parc Marítim-Terrestre de les Illes Atlàntiques de Galícia (amb 8480 hectàrees); el Parc Nacional de Timanfaya (5107 hectàrees, a la costa occidental de l’illa canària de Lanzarote); el Parc Nacional de la Caldera de Taburiente (4690 hectàrees, a l’illa canària de La Palma); el Parc Nacional de Garajonay (3986 hectàrees, a l’illa canària de la Gomera), i, finalment, el Parc Nacional de les Tablas de Daimiel (1928 hectàrees, a la confluència dels rius Guadiana i Cigüela, a la província de Ciudad Real).
4.1. Defineix els conceptes següents: biodiversitat, lluita biològica i lluita integrada.
4.2. Llegeix els textos a i b, que parlen de dos fets esdevinguts a Austràlia, i formula una hipòtesi que els expliqui. Digues què et fa pensar que el teu punt de vista és encertat i com ho podries comprovar.
a)Per tal de combatre les plagues dels cultius de canya de sucre, l’any 1933 s’hi va importar el gripau de les maresmes, un animal verinós originari de l’Amèrica del Sud que s’alimenta dels escarabats que perforen i fan malbé el tronc de la canya de sucre. El resultat no ha estat positiu: no tan sols no és eficaç contra aquests escarabats, sinó que enverina els gossos i altres animals que intenten menjar-se’l.
b)L’any 1839 s’hi van introduir les figueres de moro com a plantes ornamentals. Ben aviat, però, es van començar a escampar i en menys d’un segle havien envaït més de vint milions d’hectàrees. Per fer front al problema, s’hi va importar una papallona, l’eruga de la qual menja les flors d’aquesta planta. En pocs anys, les erugues van deixar lliure de figueres de moro el 95% de l’àrea afectada.
4.3. Consulta una enciclopèdia, fes una recerca bibliogràfica sobre el tema dels conills a Austràlia i respon a les preguntes següents: Com ha evolucionat el problema? Ha afectat altres espècies? Quin és l’estat actual de la qüestió? Què és la mixomatosi? Quin origen té? Quina és la situació de la mixomatosi a Europa?
4.4. El paludisme o malària és la principal malaltia infecciosa arreu del món. Cada any provoca milions de morts. És causada per un protozou paràsit que viu a la sang i es transmet per mitjà de la picadura de les femelles del mosquit anòfel. L’esquema de la dreta mostra el cicle biològic d’aquest mosquit, que es desenvolupa a l’aigua. Fes les consultes necessàries i digues en quins països aquesta malaltia és endèmica i què es fa per combatre-la.
Pupa aquàtica
Larva aquàtica
4.5. L’anguila, la bagra, el barb, el blackbass, la carpa, el luci, la tenca, la truita comuna, la truita irisada i el silur són peixos dels rius i els llacs de Catalunya. Digues quines d’aquestes espècies són autòctones i quines són introduïdes.
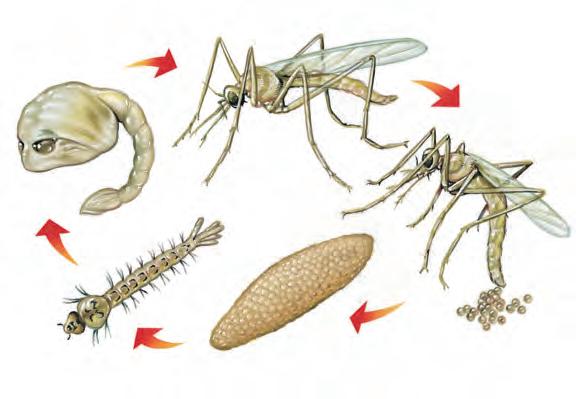
Cicle biològic del mosquit anòfel.
Origen geogràfic d’algunes plantes de conreu i alguns animals domèstics.
L’ésser humà no és un espectador de la natura, sinó que en forma part. Moltes cadenes tròfiques l’inclouen, i des que existeix ha hagut d’aprendre a seleccionar els seus aliments. Ovelles, cabres, vaques i porcs són alguns dels seus animals domèstics, descendents dels animals salvatges amb què compartia la natura de l’Europa i l’Àsia prehistòriques. Arran del descobriment de noves terres, la cultura occidental ha incorporat altres animals domèstics, com ara el gall dindi, que ja criaven els indígenes americans.
La mateixa situació es repeteix pel que fa a les plantes cultivades. Va ser precisament el domini de l’agricultura, que va començar a l’actual Pròxim Orient alguns mil·lennis abans de l’inici de la nostra era, el fet clau que va determinar l’origen de les ciutats, conseqüència del pas de les poblacions humanes del nomadisme al sedentarisme. Les plantes que actualment cultivem tenen orígens diversos, sovint molt allunyats.
Amèrica del Nord
Gira-sol Gall dindi
Amèrica Central Alvocat
Blat de moro Cacau
Mongeta
Tomàquet
Amèrica del Sud
Pinya tropical Meló Patata Pebrot
Conill porquí Llama
Estepes del sud-oest Cav all
Europa del Sud Civ ada Oliva Raïm Bou Oca Porc
Pròxim Orient Blat
Ordi
Pèsol
Ase Be Cabra
Dromedari
Àsia Central Alfals Camell
Himàlaia Iac
Àsia del sud-est
Arròs Plàtan Gallina Porc
Xina Soja
Pacífic sud Coco 0
Moltes de les plantes cultivades i dels animals domèstics s’assemblen ben poc als seus avantpassats silvestres. Hi ha al darrere una llarga història d’esforç per millorar-ne la «qualitat»; és a dir, per fer que els animals tinguin més carn, donin més llet o criïn més, i que les plantes facin la llavor o el fruit més grossos i siguin més resistents al fred o a les plagues.
Així, per exemple, el blat, que ens proporciona la farina, té una llarga història. Es tracta d’una gramínia del gènere Triticum, les espècies del qual són originàries dels països mediterranis i de l’Àsia Menor. En aquestes zones encara es troben formes silvestres de blat, d’espiga i gra menuts, que fan possible l’estudi de la història genètica del blat cultivat. Aquest blat és el fruit de la selecció humana, i s’ha beneficiat, en aquest cas, del fenomen de duplicació del nombre de cromosomes, fenomen relativament freqüent entre les plantes, el qual, sovint, les fa més grosses i vigoroses.
Les primeres restes arqueològiques de grans de blat provenen d’Egipte i tenen una antiguitat d’uns 18000 anys. El primer blat cultivat va ser el Triticum monococcum o espelta petita, amb 14 cromosomes. Després d’un llarg procés de selecció, la hibridació amb una gramínia silvestre (Aegilops speltoides, amb 14 cromosomes) i la posterior duplicació del nombre de cromosomes van donar origen al blat dur (Triticum durum, amb 28 cromosomes), que s’usa actualment per a sèmoles i pastes de sopa. L’actual blat comú (Triticum aestivum, de 42 cromosomes) és fruit de noves seleccions, d’una hibridació amb una altra gramínia silvestre (Aegilops squarrosa, amb 14 cromosomes) i, novament, d’una duplicació del nombre de cromosomes.
La conservació de les espècies silvestres és molt important. Els gens que han desenvolupat aquestes plantes com a resposta a les pressions naturals (plagues, malalties, sequera, pastura, etc.) continuen servint per millorar-ne les formes cultivades.
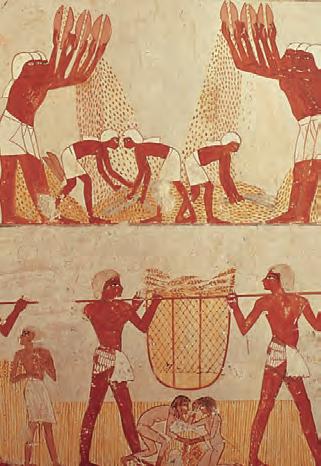
Fragment d’un mural egipci del segle XV aC que representa una escena de la collita del blat.
La reproducció selectiva ha conduït a formes de blat més robustes, en què s’aprofita la multiplicació del nombre de cromosomes (indicat per les xifres entre parèntesis). Algunes espècies silvestres, com ara les quatre últimes, encara creixen en erms de l’Orient Mitjà i constitueixen una important reserva de biodiversitat.
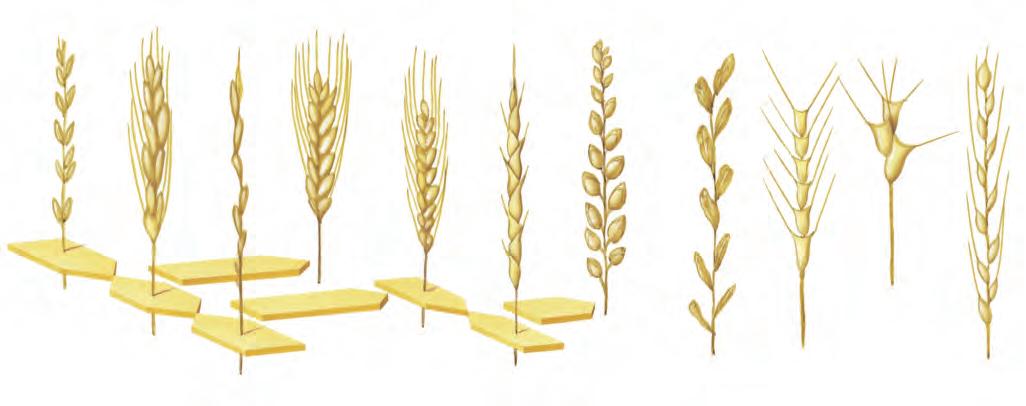
La hibridació i l’encreuament experimental han estat la base per a la millora de les races cultivades. Actualment, però, la biotecnologia i, sobretot, l’enginyeria genètica ofereixen noves possibilitats.
El genotip és la constitució hereditària de l’individu. El fenotip, en canvi, és l’aspecte extern que presenta l’individu d’un determinat genotip i és el resultat de la interacció del genotip i l’ambient. Aquests dos termes es poden aplicar tant a l’individu en conjunt com només a un determinat gen o caràcter.
2.2. La millora de les races cultivades
Dins d’una mateixa espècie, els individus difereixen els uns dels altres per molts caràcters. En la majoria dels casos, es tracta de caràcters hereditaris, perquè són l’expressió de gens diferents; i, en el cas dels caràcters quantitatius, de molts gens diferents alhora. Els caràcters que tenen a veure amb el rendiment (el pes, la producció de llet o de carn…) són molt importants des del punt de vista econòmic, de manera que l’objectiu de la cria o del cultiu és, sovint, millorar-los, augmentar-los…
Per aconseguir-ho, el criador pren únicament com a reproductors els individus més dotats per al caràcter en qüestió. Aquest procés s’anomena selecció artificial, i n’hi ha de diversos tipus. Sigui quin sigui el procés de selecció utilitzat, la generació següent no és mai idèntica als seus progenitors, ja que no tota la variació és hereditària i perquè hi ha caràcters hereditaris no gaire avantatjosos que poden reaparèixer. De fet, hi ha una variació fenotípica, deguda a les condicions ambientals, i una variació genotípica, deguda als gens.
S’anomena heretabilitat el quocient entre la variació genotípica i la variació fenotípica. Aquest valor, que oscil·la entre 0 i 1, expressa la part de la variació que té un origen genètic. L’heretabilitat varia d’un caràcter a un altre, i com més baix és el valor que la representa, més difícil resulta la millora agrícola o ramadera.
Per millorar les espècies, agricultors i ramaders recorren a la hibridació, és a dir, a l’encreuament d’individus de races diferents, a fique els fills heretin les característiques positives de totes dues generacions. Lògicament, i el que acabem de veure ho explica en part, aquest és un procés lent; sovint es necessiten moltes generacions per fixar un conjunt de característiques desitjables.
Empeltar consisteix a inserir una part d’una planta sobre una altra (el patró).
Ara bé, en la hibridació a vegades es produeix un fenomen d’heterosi, que consisteix en el fet que els descendents presenten un vigor superior a la mitjana dels pares. Desgraciadament, aquest vigor no es manté en les generacions successives, de manera que, com passa amb el blat de moro, cal procedir contínuament a la hibridació, generació rere generació.
Per portar a terme la selecció o la hibridació, l’agricultor recorre sovint a l’encreuament experimental: per tal d’evitar que les plantes s’autofecundin, elimina els òrgans masculins d’algunes flors, les quals actuen d’aquesta manera com a femelles receptores del pol·len de la flor triada com a masculina. Molt sovint, però, quan l’agricultura disposa d’una varietat que vol conservar, evita la reproducció sexual, font de variació, i practica la multiplicació vegetativa, per mitjà, per exemple, de l’esqueix o l’estaca. Això assegura que les noves plantes que
es desenvoluparan seran genèticament idèntiques a la progenitora, ja que en formen part.
El ramader criador, per la seva banda, recorre cada vegada més a la inseminació artificial, que permet assegurar que l’esperma que rep la femella és d’un mascle d’una raça molt ben dotada per al caràcter desitjat. Ara bé, en l’actualitat, els progressos de la genètica i de la biotecnologia obren les portes a un futur ben diferent.
Abans, la cria dels animals domèstics era gairebé un art, l’art de ferlos néixer, créixer i reproduir-se. Modernament, i especialment en els darrers decennis, la producció animal s’ha convertit, cada vegada més, en cria industrial, amb l’aplicació d’un conjunt de tècniques destinades sobretot a millorar la productivitat i la rendibilitat de les races criades.
L’espectacular producció animal d’avui dia es fonamenta en tres pilars: una alimentació més eficient, la millora genètica del bestiar i l’ús d’instal·lacions de cria «industrials». Les races que produeixen més, aconseguides per mitjà de la selecció genètica, estan suplantant les races autòctones, fins al punt que es perd variabilitat i els animals de cria s’uniformitzen.
En l’actualitat, per exemple, les races de gallines ponedores ponen al voltant de 250 ous l’any, enfront dels 80 per any d’abans. Els pollastres de cria arriben a la maduresa en poc més de vint setmanes, i els porcs aconsegueixen 100 kg de pes en menys de sis mesos. Per la seva banda, algunes races de vaques lleteres produeixen una mitjana superior a 6500 kg de llet per any respecte dels 4500 kg per vaca a l’any considerats òptims fa només una vintena d’anys. Probablement, algunes d’aquestes dades quedaran superades en un futur pròxim.
El tercer pilar, l’ús d’instal·lacions de cria «industrials», permet la concentració, l’especialització, l’automatització i la intensificació de la producció per mitjà del control de paràmetres com ara la llum, la temperatura o l’alimentació i la neteja.
Els objectius de la cria industrial, que supera en volum la cria artesana, persegueixen augmentar la quantitat, disminuir els costos i controlar la qualitat dels productes.
Tanmateix, aquest model trontolla, sobretot arran d’alguns ensurts que han afectat la ramaderia, com ara la crisi de les vaques boges. No sembla raonable, ni per raons sanitàries ni per raons ètiques de respecte envers els animals, de continuar amb unes pràctiques que valoren, com sovint s’ha fet fins ara, l’eficiència econòmica per sobre de tot.
La facilitat i la rapidesa amb què es crien milers i milers d’animals posen a l’abast dels habitants dels països més desenvolupats una
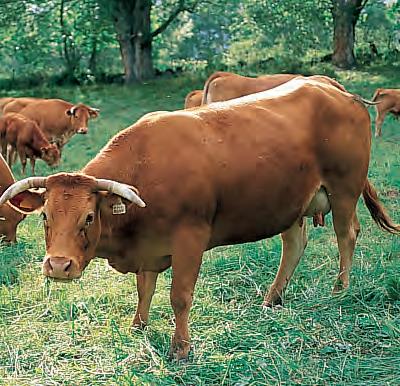
Munyiment automàtic controlat per sistemes informàtics.
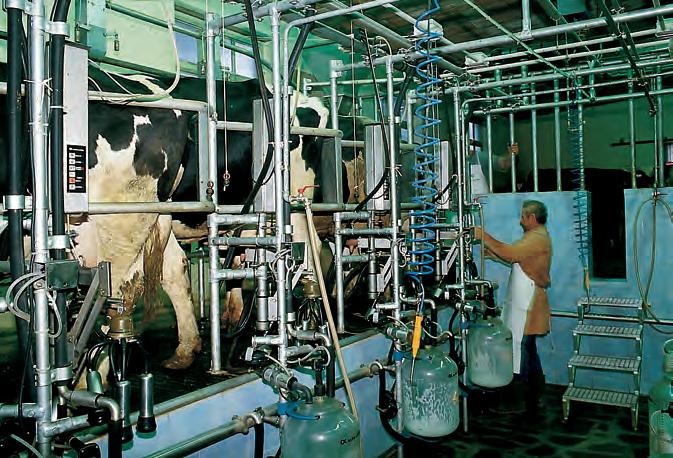
alimentació rica en proteïnes. Ara bé, l’afany de lucre mai no hauria d’anteposar-se a dos reptes indefugibles: la salut del consumidor, que pot veure’s afectada per determinats productes usats en la cria, i el respecte per la dignitat de la vida animal.
La crisi de les vaques boges fou clarament advertida a Europa l’any 1996, després que, en la dècada de 1980, centenars de milers de caps de vacum haguessin quedat afectats per la malaltia a la Gran Bretanya. Aquests caps de bestiar, com també carn i restes orgàniques d’aquells animals, malgrat tot foren exportats a Europa i a altres països sense controls eficaços i es va propagar així una malaltia que no solament requerirà molts esforços i molts diners per ser controlada, sinó que afecta greument sectors econòmics que en són víctimes passives.
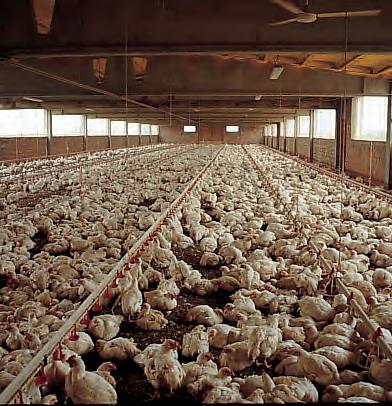
La cria industrial persegueix augmentar la quantitat de producte, disminuir-ne els costos i controlar-ne la producció.
Per alimentar el bestiar fa temps que s’utilitzen els denominats pinsos compostos, que consisteixen bàsicament en proteïnes vegetals o animals, enriquits amb additius diversos: minerals i vitamines, antibiòtics i altres medicaments per prevenir i controlar malalties (especialment les infeccioses, molt greus en la cria massiva), etc. Els pinsos compostos s’obtenen per mitjà de processos industrials a partir de subproductes agrícoles o animals (farines vegetals, farina de peix, farines de carn, llet en pols, etc.).
La composició de cada pinso depèn de l’espècie a què va destinat, però també de l’edat de la cria. És diferent, per exemple, el cas d’un pollastre de cria del d’una gallina ponedora. En aquest segon exemple, la fórmula cal que sigui més rica en greixos i acostuma a contenir blat de moro, farines de fava de soja i altres vegetals, farines d’origen animal (ossos i vísceres), polpa de fruites, vitamines (A, D, E…), minerals, antibiòtics…
Quant als animals remugants, com ara la vaca, l’alimentació n’ha de tenir en compte les característiques i planteja situacions interessants. D’una banda, hi ha la necessitat de disposar de farratge sec durant l’hivern, que avui dia se soluciona amb la pràctica de l’ensitjament. Aquesta pràctica consisteix a conservar el farratge lluny del contacte amb l’aire, en grans masses comprimides que se situen a l’interior de sitges o es colguen sota una rasa, sota una coberta plàstica, etc. Com que disminueix l’oxigen, s’hi produeixen fermentacions anaeròbiques que faciliten la conservació del farratge i, lluny de fer-lo malbé, aconsegueixen que sigui més assimilable.
De fet, els remugants no disposen dels enzims necessaris per digerir la cel·lulosa de l’herba. Els qui ho fan són els microbis que viuen a l’interior del seu complicat estómac, de manera que alimentar vedells és alimentar microbis! Per tant, la cria de vedells serà més eficient com més adequada sigui l’alimentació dels microbis. Les investigacions en aquest terreny han conduït a la pràctica d’afegir a l’alimentació dels vedells un suplement de matèries nitrogenades d’origen divers. A vegades aquests productes s’obtenen a partir de deixalles d’escorxador i de vísceres animals. Aquesta és la causa de la propagació, de les ovelles a les vaques, de la denominada malaltia de les vaques boges, una malaltia infecciosa de llarga evolució que també afecta l’ésser humà (variant de la síndrome de Creutzfeldt-Jakob). La causant d’aquesta malaltia és una proteïna infecciosa o prió que, procedent de les deixalles d’escorxador amb què s’ha alimentat el bestiar, pot arribar fins a l’espècie humana mitjançant la cadena alimentària, més concretament a través de la carn del vacum o, probablement, d’altres vies, com ara subproductes emprats en la fabricació de menjars preparats, gelats, galetes, cremes, etc. Una altra pràctica recent consisteix en l’ús dels denominats probiòtics, que són uns microbis vius que s’afegeixen als pinsos per millorar la digestió dels vedells.
producció d’aliments
Durant segles, els processos de millora d’animals i de plantes cultivades s’han fet de manera empírica. Actualment, els progressos de la biologia i de la tècnica permeten aplicar la biotecnologia a fi d’augmentar el rendiment de les explotacions agrícoles i ramaderes.
Així, per exemple, en comptes de deixar que cada ovella d’un ramat s’aparelli i criï al seu aire, en èpoques diferents, es pot aconseguir, per mitjà de l’administració d’hormones sexuals, la sincronització de la gestació de totes les femelles del ramat. Aquesta pràctica, cada vegada més freqüent, facilita el control del ramat, i permet augmentar el nombre de cries, a més d’ajustar la producció als períodes de més demanda.
El procés consisteix a implantar a l’interior de la vagina de l’ovella una esponja impregnada d’hormona progesterona, la qual, com si fos
Per mitjà de l’ensitjament s’obté farratge per a l’alimentació del bestiar.
El terme biotecnologia comprèn nombroses activitats tecnològiques d’índole diversa, les quals, tanmateix, tenen en comú el fet que en totes s’aprofiten o es dirigeixen les facultats primordials dels éssers vius.
Microinjecció d’ADN dins d’un embrió.
una píndola anticonceptiva, manté l’animal infèrtil. Arribat el moment de la reproducció, es retira l’esponja i s’administra una injecció d’hormona que estimula l’ovari; seguidament, un parell de dies després, ja es pot procedir a la inseminació artificial o deixar que la femella s’aparelli.
Des de fa uns quants anys, s’aplica també (especialment en el bestiar boví) el trasplantament d’embrions. Se selecciona una vaca (donadora) que concep l’embrió, el qual després es trasplanta a una altra vaca (receptora), a l’interior del cos de la qual es desenvolupa i arriba a terme. A més, els embrions, abans de ser implantats a la vaca receptora, sovint són micromanipulats fins a dividir-los en dues parts, de manera que se n’obtenen dos vedells bessons, genèticament idèntics.
La sincronització reproductora i el trasplantament d’embrions s’usen a bastament per obtenir millors rendiments en la cria del bestiar.
2.6. L’agricultura, la ramaderia i l’enginyeria genètica
L’enginyeria genètica és un conjunt de tècniques que permeten modificar el patrimoni genètic dels éssers vius, per mitjà de la transferència de gens (fragments d’ADN). La majoria d’aquests procediments són, ara per ara, molt costosos, però tot i així són objecte d’una gran activitat investigadora, ja que ofereixen moltes possibilitats. Els exemples següents il·lustren el panorama actual de la qüestió.
La fusió de protoplasts i la multiplicació per calls
Les cèl·lules vegetals desproveïdes de parets de cel·lulosa (protoplasts) són viables i cultivades in vitro formen masses de cèl·lules (calls) que convenientment tractades originen noves plantes. D’aquesta manera, les plantes es poden criar aïllant-les de possibles infeccions. Actualment, molts vegetals ja es propaguen així.
A més, protoplasts de plantes diferents es poden fusionar, cosa que dóna lloc a protoplasts híbrids, els quals originen plantes «noves» amb característiques que no s’obtindrien d’altra manera perquè una part de l’herència biològica és citoplasmàtica (no és en els gens de l’ADN del nucli, sinó en els d’alguns orgànuls cel·lulars: cloroplasts i mitocondris) i en la reproducció sexual normal només s’hereta per via materna.
La manipulació genètica i l’empelt de gens
Actualment, ja és possible transferir gens d’un bacteri a una planta superior. El procés requereix la combinació de diversos factors: enzims específics de l’ADN (proteïnes que catalitzen les reaccions biològiques); bacteris o altres elements «infecciosos» que actuïn de vectors per introduir els gens a l’interior de la planta; tecnologia punta; un laboratori molt complex, amb els processos automatitzats, que permeti condicions de cultiu de la màxima seguretat, amb l’ús de sondes i d’isòtops radioactius com a marcadors. Ja s’han obtingut i es comercialitzen plantes de tomàquet, tabac, patata, soja, blat de moro, cotó, colza, etc., que han incorporat gens resistents a determinats antibiòtics o herbicides, o que també han incorporat productors de substàncies tòxiques per a determinats insectes que se les mengen. L’abast de les possibilitats és amplíssim. El debat actual, deixant de banda qui surt beneficiat econòmicament de la producció i del comerç d’aquest tipus de plantes, se centra en la seguretat d’aquests productes amb vista al consum humà. Hi ha gent que opina que no s’han fet prou anàlisis per comprovar la innocuïtat d’aquests vegetals i per saber si aquesta mena de plantes poden provocar al·lèrgies i si són prou segures per al medi ambient, o, al contrari, poden generar microbis i insectes resistents, o fins i tot poden proliferar i estendre’s sense fre, ja que són immunes a alguns herbicides.
D’altra banda, la fixació del nitrogen atmosfèric és, per a l’agricultura, un repte econòmic de primera magnitud. Les plantes no la poden fer, però sí alguns bacteris, com ara els Rhizobium, perquè tenen uns gens, anomenats nif, que els proporcionen els enzims necessaris per al procés de fixació. Aquests microbis viuen en simbiosi amb les arrels de les lleguminoses (favera, mongetera, soja, llentilla, etc.).
Des de fa anys, la recerca biològica intenta seleccionar varietats de microbis més eficaços, «crear» simbiosis amb altres plantes, per exemple l’arròs, i, sobretot, transferir els gens nif a les plantes, lleguminoses o no. Això milloraria moltíssim la productivitat, estalviaria centenars de milions d’euros en adobs i reduiria la contaminació de les aigües superficials procedent dels nitrats que contenen alguns adobs.
La tecnologia de l’ADN permet la manipulació genètica.
Procés d’obtenció de vegetals transgènics.
3.El bacteri es fa servir per introduir el gen dins el nucli de la
4. La cèl·lula es multiplica.
5.Propagació i cultiu in vitro.
6.S’obtenen plantes transgèniques.
Producció d’embrions donadors de nuclis
Vaca de potencial genètic alt
Superovulació i inseminació Col·lecció d’embrions
En el cas dels animals, les dificultats tècniques són molt més grans, i ara per ara només s’han aconseguit alguns resultats de laboratori, per exemple ratolins gegants a partir d’òvuls en què s’havia implantat un gen humà responsable de l’hormona del creixement. Allò que en aquest camp suscita grans expectatives és la producció d’animals (sobretot porcs) que, havent incorporat gens humans, siguin susceptibles de proporcionar òrgans que puguin ser trasplantats a les persones sense generar rebuig.
Els éssers que posseeixen un patrimoni genètic idèntic es denominen clons. S’anomena clonació el procés que porta a la formació o a l’obtenció d’un clon o d’un organisme clònic.
Producció d’ovòcits receptors
Recollida d’ovaris a l’escorxador
Punció dels ovòcits
Maduració in vitro
El 22 de febrer de l’any 1997 es va donar a conèixer el desenvolupament experimental (portat a terme pels investigadors escocesos de l’equip del professor Ian Wilmut) d’un particular animal clònic: l’ovella Dolly. Aquell animal clònic era el resultat d’una transferència nuclear des d’una cèl·lula donant, diferenciada, fins a un oòcit no fecundat (i desproveït experimentalment de nucli), el qual posteriorment va ser implantat en una femella portadora. Després, i per mitjà de procediments similars, s’han obtingut animals clònics com l’ovella Dolly en altres espècies animals.
Mòrula de 6 dies
Dissociació de les cèl·lules
Trasplantament a l’úter d’una jònega receptora
Associació, fusió, activació
Enucleació per micromanipulació
Cultiu durant 6 o 7 dies
Congelació
La novetat de l’ovella Dolly consistia justament en el fet que la cèl·lula de la qual prové és una cèl·lula diferenciada o especialitzada, procedent d’un teixit concret (la glàndula mamària) d’un animal adult. Fins aquell moment se suposava que només es podien obtenir animals clònics a partir de cèl·lules procedents d’embrions (no especialitzades). En el futur, la ramaderia podrà beneficiar-se d’aquestes tècniques per aconseguir animals clònics a partir dels exemplars més productius o més resistents a determinades malalties.
a) L’ovella Dolly.
b) Esquema de l’obtenció d’animals de cria per manipulació genètica.
4.6. Fes una relació dels productes animals i vegetals que has consumit en les darreres 24 hores i, a continuació, respon a les preguntes següents:
a)Quin és l’origen de cadascuna de les espècies que has menjat?
b)On s’han criat?
4.7. Sovint es diu que és ecològicament negatiu el fet que l’alimentació humana actual es basi sobretot en la ingestió de consumidors (la carn dels herbívors), en lloc de productors (plantes), i que seria millor que fos al revés.
a)Comenta quins avantatges i quins inconvenients té cada alternativa.
b)Comenta, en aquest mateix sentit, si seria factible o no basar l’alimentació humana en la producció marina. Raona la resposta.
4.8. a)Defineix els termes hibridació, heterosi, inseminació artificial i multiplicació vegetativa.
b)Defineix els termes ensitjament i sincronització reproductora
4.9. La llei de protecció dels animals (Llei 3/1988) considera que són espècies protegides de la fauna salvatge autòctona un total de 14 espècies de mamífers, a més de totes les espècies de ratpenats. Busca informació en una hemeroteca o a Internet (consulta el web www.espaibarcanova.cat) i contesta a les preguntes següents:
a)Quines són aquestes espècies protegides?
b)Quantes espècies protegides d’ocells hi ha?
c)Quines són les espècies protegides de rèptils, amfibis i peixos?
4.10. Un equip d’investigadors va aconseguir crear ovelles transgèniques després d’injectar el gen humà del factor IX de coagulació de la sang en òvuls d’ovella fecundats. Aquestes ovelles tenen a la sang, i fins i tot a la llet, quantitats considerables de l’esmentat factor IX de coagulació, que els malalts d’hemofília no tenen.
Com interpretes el comentari següent, extret d’un diari: «Aquesta mena d’animals transgènics seran com “bioreactors vius” per a la producció de molècules d’interès farmacèutic, com ara el factor IX que necessiten els hemofílics, però també de moltes altres molècules, que es podran obtenir, purificades, a partir de la llet, la sang o l’orina d’aquests animals».
4.11. Llegeix l’apartat «La biologia i l’economia. La producció d’aliments» d’aquesta unitat i reflexiona sobre el que s’hi diu. Després, redacta un informe sobre com creus que serà l’alimentació humana d’aquí a vint o vint-i-cinc anys i quins canvis experimentarà. Procura argumentar les teves impressions.
Les persones hemofíliques necessiten factors de coagulació de la sang que el seu organisme no produeix. Els animals transgènics poden facilitar el tractament d’aquests malalts.
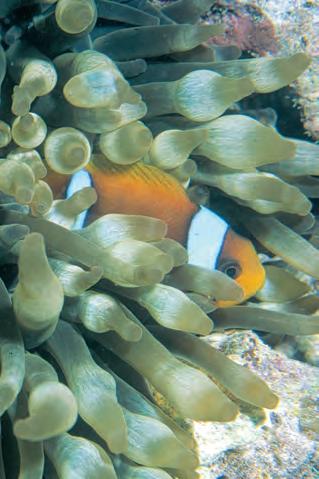
4.12. Digues què són l’efecte d’hivernacle i la pluja àcida, com es produeixen i quins efectes tenen.
4.13. Llegeix el text següent i, després, resol les qüestions que hi ha a continuació:
La selva, l’ambient terrestre on més prolifera la vida, té un equivalent marí en els esculls coral·lins. Els pòlips coral·lins que construeixen els esculls són animals, però els seus cossos contenen un gran nombre de petits grànuls bruns i groguencs de naturalesa vegetal. Són algues diminutes –zooxantel·les– que guarden un parentiu íntim amb les algues del plàncton. Aquests éssers diminuts, a l’interior de l’animal, absorbeixen els seus productes d’excreció i es valen dels fosfats i els nitrats per sintetitzar proteïnes i, amb la col·laboració del sol, utilitzen el diòxid de carboni per formar glúcids. En el transcurs d’aquest últim procés les zooxantel·les alliberen oxigen, que és justament el que el pòlip necessita per respirar. Així, els pòlips i les zooxantel·les en surten beneficiats.
a)Quina és la relació interespecífica que mantenen els pòlips i les zooxantel·les? Posa’n un altre exemple.
b)Quin nom té el procés per mitjà del qual les zooxantel·les fabriquen glúcids i alliberen oxigen?
c)Considera els organismes de l’ecosistema marí que hi ha a continuació i dibuixa el diagrama d’una possible xarxa tròfica:
– Blènnids (peixos que s’alimenten de petits invertebrats macroscòpics).
– Anemones (cnidaris que viuen fixos al substrat i capturen animalons microscòpics).
– Copèpodes (crustacis microscòpics del plàncton que s’alimenten del fitoplàncton).
– Dinoflagel·lades (algues microscòpiques del plàncton).
– Rodòfits (algues pluricel·lulars bentòniques).
– Ballarines espanyoles (cargols –gasteròpodes– que mengen anemones).
– Rubioques (peixos carnívors que s’alimenten d’altres peixos i d’invertebrats planctònics).
– Diatomees (algues microscòpiques del plàncton).
– Taurons (peixos que mengen invertebrats i altres peixos grossos).
– Peixos cirurgià (s’alimenten d’algues pluricel·lulars).
– Peixos netejador (s’alimenten de paràsits i restes adherides al cos d’altres peixos).
– Peixos pallasso (viuen en simbiosi amb les anemones).
– Gambetes (crustacis que mengen algues pluricel·lulars).
d)Escriu un parell de les cadenes tròfiques més llargues d’aquest ecosistema.
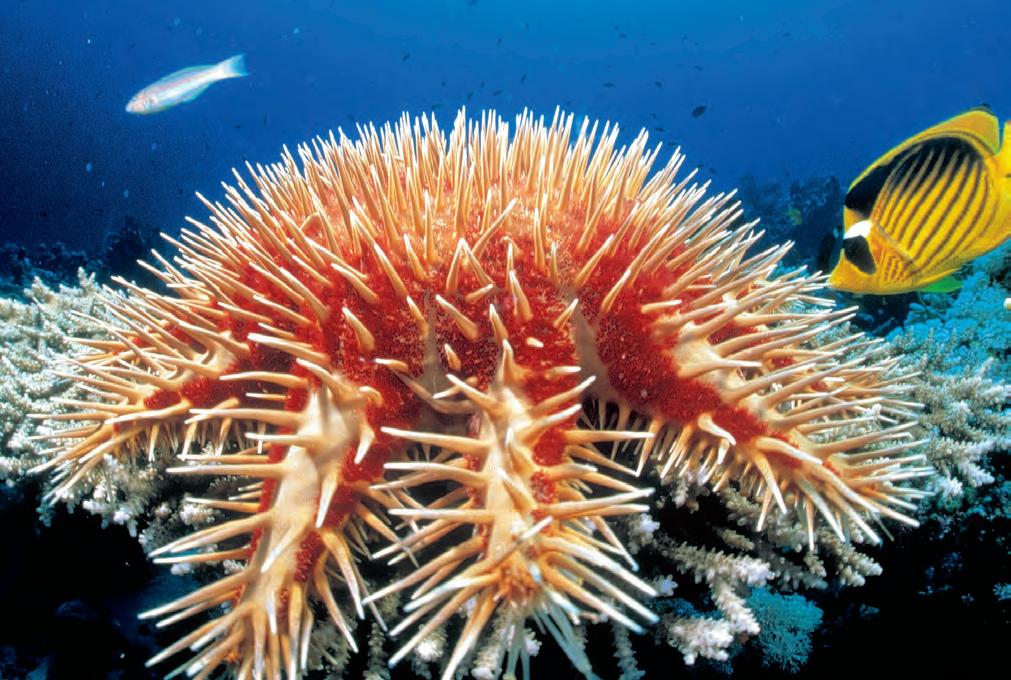
e)Per què es compara l’ecosistema coral·lí amb la selva? Creus que el nombre de nivells tròfics de l’ecosistema coral·lí pot augmentar indefinidament? Raona la resposta.
f)La corona d’espines és una estrella de mar molt voraç que s’alimenta dels coralls; en pot arribar a consumir un metre quadrat diari. Actualment és un perill molt gran per als esculls coral·lins, ja que no es coneix cap sistema eficaç per reduir-ne la voracitat. Se suposa que l’acció humana sobre les condicions de vida de la seva fase larvària pot tenir a veure amb la seva voracitat. Suggereix alguna hipòtesi que pugui explicar aquest fenomen.
g)Digues quins efectes poden tenir sobre els esculls de corall els factors següents:
– La variació d’un parell de graus de la temperatura del mar.
– L’augment del nivell del mar a causa de l’efecte d’hivernacle. Si el nivell del mar augmentés, quedarien afectades altres espècies a part dels coralls? Per què?
h)Poques coses hi ha tan boniques com una badia coral·lina. A les illes Hawaii n’hi havia moltes, però al seu voltant es van començar a construir apartaments, xalets, hotels i bungalous. Tantes obres de construcció van aportar moltes runes a l’aigua, que va perdre transparència i es va enterbolir. En aquest ambient, els coralls es van morir. Per què els coralls no toleren les aigües tèrboles?
4.14. Els problemes bàsics de la conservació de la biodiversitat no són biològics, sinó polítics, econòmics, socials i, fins i tot, ètics. Segons el professor Gonzalo Halffter, l’esquema següent explica el procés d’explotació i de cultiu als països tropicals. Estudia’l.
Demanda d’un producte als països industrialitzats (cafè, plàtans, sucre…)
Extensió de l’explotació o el cultiu a zones marginals de menys producció o més risc ecològic
Degradació ecològica
Transformació d’un paisatge i una cultura heterogènia en un monocultiu
Saturació del mercat. Baixen els preus
Crisi econòmica i social amb repercussions ambientals
PÈRDUA DRÀSTICA DE BIODIVERSITAT
Ara, fes un esquema que relacioni els fets i els sistemes conceptuals següents. Afegeix-hi els que creguis convenients.
–Producció, per a l’exportació, de productes no elaborats (mal pagats).
–Falta de desenvolupament científic itecnològic.
–Pobresa.
–Futur incert.
–Augment de la població.
–Mal ús dels recursos naturals.
–Augment de la pressió sobre els recursos naturals, especialment sobre les àrees encara poc pertorbades.
–Pèrdua de biodiversitat.
–Degradació ambiental.
–Més dependència tecnològica i econòmica.
–Més endarreriment.
–Contaminació.
–Més dependència a causa de l’exportació de pocs productes.
4.15. Llegeix aquestes dues notícies de premsa i resol les qüestions que hi ha a la pàgina següent:
LA FIRADEL GALLDE VILAFRANCA
EXPOSAMÉSDE 2500 PECESD’AVIRAM
AVUI, Vilafranca del Penedès Durant tot el cap de setmana més de 2500 peces d’aviram de la millor qualitat s’exhibeixen en aquesta tradicional fira. Els visitants tenen la possibilitat de mirar, triar i comprar l’aviram autòcton del Penedès. Sens dubte, les estrelles de la fira són el gall del Penedès i l’ànec mut.
Si s’ha decidit per un bon àpat de Nadal amb gall o ànec de segon plat i encara no ha comprat la peça, Vilafranca del Penedès li ofereix fins avui una bona oportunitat d’adquirir el millor aviram, segons han destacat durant tot el cap de setmana els organitzadors del certamen.
L’organització de la XXI Fira del Gall de Vilafranca, la Cooperativa Aviram del Penedès i l’Ajuntament, amb la col·laboració de Penedès Gastronòmic, s’han marcat com a objectiu principal de la mostra oferir un aviram autòcton de màxima qualitat.
LA FAO ADVERTEIXSOBREELPERILL
D’UNAPÈRDUARÀPIDADEVARIETATDECULTIUS
ELPAÍS, Madrid
L’Organització de les Nacions Unides per a l’Agricultura i l’Alimentació (FAO) va advertir ahir, en el primer informe extens sobre l’afer, del perill que representa la pèrdua massiva de recursos fitogènics en el món, «davant de la generalització de l’agricultura comercial moderna i la introducció de varietats de cultius noves». L’informe es basa en les dades que ofereixen més de 150 treballs dels països membres de la FAO.
A la Xina, per exemple, el 1949 s’utilitzaven unes 10000 varietats de blat; a la dècada de 1970 només se’n conservaven 1000, segons la FAO. Als països andins s’està a punt de perdre una gran varietat de tubercles semblants a la patata.
Als Estats Units –un dels països on hi ha més documentació sobre la deterioració biològica–, hi ha moltes varietats que ja no es troben ni a l’agricultura comercial ni als bancs de germoplasma. De les 7000 varietats de pomers utilitzades en el segle XIX, se n’ha perdut
el 86%; així com el 95% de les de col, el 91% de les de blat, el 94% de les de pèsols i el 81% de les de tomàquets. A Espanya també s’ha perdut, per exemple, la major part de les 300 varietats de pomers que es registraven a la serralada cantàbrica.
Aquesta uniformitat de cultius fa que l’agricultura es torni especialment vulnerable a les plagues i als canvis climàtics.
Jacques Diouf, director general de la FAO, va declarar ahir a Roma: «La diversitat de la vida a la Terra és essencial per a la supervivència de la humanitat. La conservació i la utilització dels recursos fitogènics són vitals perquè la productivitat agrícola millori i es mantingui i contribueixen a la seguretat alimentària i també a alleugerir la pobresa».
a)Compara l’agricultura tradicional amb la moderna. Explica per què l’una conserva més variabilitat de cultius que l’altra.
b)L’agricultura moderna, comporta la pèrdua de varietat dels cultius? Per què?
c)Aquesta pèrdua de biodiversitat, és perjudicial? Explica’n els motius. Quina utilitat pot tenir el fet de conservar varietats que potser no són gaire productives?
d)Pregunta als teus familiars quines varietats de fruites i vegetals cultivats, comunes fa uns quants anys a la població on vius, han desaparegut i com eren.
e)Digues algunes varietats o races locals d’animals domèstics i de plantes cultivades pròpies del teu entorn, i comenta’n les característiques.
f)Quina criança i alimentació han de tenir alguns dels animals que acabes d’esmentar?
g)Què cal fer perquè no es perdin més varietats de cultius i de races d’animals domèstics autòctons? Paga la pena? Què és el que podem fer nosaltres?
4.16. Concreta la influència de l’activitat humana sobre aquests aspectes:
a)la biodiversitat; b)la distribució mundial dels organismes; c)els animals domèstics; d)els cultius; e)l’extinció.
4.17. Actualment algunes espècies, com ara l’orada, es cultiven en piscifactories. En aquestes instal·lacions els peixos s’alimenten amb pinsos. Contesta a les qüestions que hi ha a continuació:
a)Digues per què la proposició següent no és acceptable: «Els pinsos probablement no són consumits en la seva totalitat pels peixos i això suposa un aportament de matèria orgànica que aprofiten sobretot les algues, per desenvolupar comunitats frondoses just a sota de la instal·lació de cria».
b)Explica en què es pot fonamentar l’impacte negatiu descrit en la frase següent: «L’aportament de matèria orgànica (del pinso) i d’excrements (dels peixos) canvia les condicions a prop del fons i produeix un impacte negatiu sobre la comunitat que hi ha just a sota de la instal·lació».
c)Suposa que la biomassa d’alevins d’orades a la instal·lació en un moment determinat és de 10kg · m–3 (pes fresc). Al cap de dues setmanes la biomassa és de 24 kg · m–3 (pes fresc). Calcula, en aquest cas, la producció neta en g m–3 dia–1 en pes sec, assumint que un 70% de la massa dels peixos és aigua.
d)Avalua el risc que els materials emprats en l’alimentació d’aquestes orades pugui representar sobre la salut del consumidor.
4.18. Llegeix el text següent i contesta a les preguntes que hi ha a continuació:
L’entorn de l’estany de Banyoles ha estat ocupat per l’home des de molt antic i el seu estat actual és el d’una àrea molt humanitzada [...]. La raresa dels paisatges lacustres al país –més encara abans de la proliferació dels embassaments, d’aspecte fins a cert punt similar– ha fet apreciar força els valors estètics d’aquests ambients [...].
La pretensió de millorar aquest paisatge i de fer-lo més amable, això és, més humà, va portar a una transformació de les vores basada en la seva urbanització i enjardinament (sobretot a les ribes oriental i meridional). La vegetació natural de les vores i els ambients aigualosos propers, de gran importància ecològica, en resultaren ben afectats. [...]
El poblament de peixos ha estat totalment alterat per les repoblacions efectuades: actualment les espècies
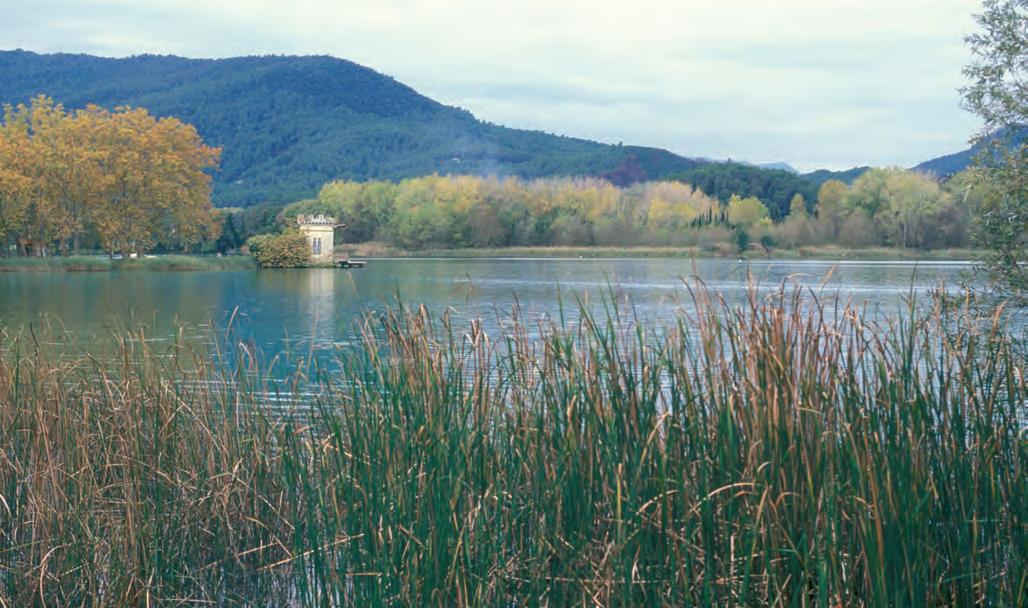
més freqüents són totes introduïdes (carpa, carpí vermell, gardí, perca americana, etc.), mentre que les autòctones són molt rares (bagra comuna, tenca, barb de muntanya) o bé han desaparegut (espinós, bavosa de riu, anguila) [...].
La contaminació és un dels problemes bàsics de l’estany [...]. L’enorme freqüentació humana té així mateix un impacte negatiu (embrutiment, trepig, etc.). D’altra banda, la celebració de les proves de rem als Jocs Olímpics de 1992 féu témer un greu impacte [...]. Finalment no ha estat tan negatiu com en un principi es pensava, i a més s’ha aconseguit la presa de consciència sobre la fragilitat de l’estany i el valor dels seus sistemes naturals.
Cal, però, el manteniment d’una gestió global molt acurada, que reguli els usos i les activitats amb incidència a l’estany i n’eviti la contaminació.
Història Natural dels Països Catalans
a)On és l’estany de Banyoles? Esbrina quina mena d’estany és i de quines aigües s’alimenta.
b)Com es pot millorar, de debò, un paisatge?
c)Quins són els problemes principals d’aquest estany? Són comuns a altres espais naturals?
d)Cal regular els usos de l’estany i les activitats que s’hi fan? Com? Posa’n exemples.
e)La conservació de l’estany de Banyoles, com també la d’altres espais naturals, és més difícil avui que no pas anys enrere, però també hi ha alguns aspectes nous ben positius. Posa algun exemple d’uns i altres. Què podem fer nosaltres per conservar aquests espais?
f)El poblament de la zona de Banyoles és molt antic. Quines restes humanes s’hi van trobar?
g)Al voltant de l’estany hi ha estanyols i brolladors. Què són?
h)Quina part de la fauna del llac és autòctona? Quina no ho és? D’on surt?
4.19. Rellegeix el document de la pàgina 128, La fil·loxera, i contesta a les preguntes següents:
a)Quina mena d’organisme és la fil·loxera?
b)Per què a Amèrica no és una plaga i aquí, sí?
c)Quan es va produir a Catalunya la invasió de fil·loxera? Quines en foren les conseqüències?
d)I ara, on és la fil·loxera? Ja no fa mal?
e)Per què es fan servir ceps empeltats? Quins són?
4.20. Fa cosa d’uns deu anys es va iniciar al nostre país la polèmica relativa al cultiu i al comerç de les plantes
modificades genèticament, com la soja o el blat de moro. Lluny d’apaivagar-se, les posicions a favor i en contra segueixen ben diferenciades, en oposició. Bona part de les raons d’uns i altres es deprenen de la lectura d’aquestes notícies, publicades als diaris pels volts del desembre de 1996. Llegeix els textos i contesta a les qüestions que hi ha a continuació. (Trobaràs més informació al web www.espaibarcanova.cat i a la unitat d’enginyeria genètica del llibre de Biologia de primer.)
CATORZEECOLOGISTESDETINGUTSPERBOICOTEJAR LADESCÀRREGADESOJATRANSGÈNICAA BARCELONA
GREENPEACEPOSAENDUBTELAINNOCUÏTAT
DELALLEGUMINOSACREADAPERUNA
MULTINACIONAL
La comercialització de la soja natural barrejada amb la modificada genèticament és legal a Espanya i a la Unió Europea des del 3 d’abril passat.
De fet, l’ Uniwesitet Jagiellonski és el segon vaixell que atraca a Barcelona per descarregar aquest producte. El primer va ser fa poc més d’una setmana, una embarcació anomenada El Pampero, de bandera veneçolana. Les descàrregues de soja realitzades anteriorment a la ciutat no tenien cap relació amb la soja transgènica.
Fins ara, Hamburg (Alemanya), Amsterdam (Holanda) i Anvers (Bèlgica) eren les portes d’entrada de la soja a Europa. La polèmica sobre la innocuïtat o no d’aquest producte continua i ha augmentat en les darreres setmanes.
La soja que ha estat objecte de polèmica ha estat desenvolupada mitjançant l’enginyeria genètica per la
multinacional nord-americana Monsanto, amb la finalitat que la planta sigui resistent a l’herbicida Roundup. La mateixa companyia agroquímica fabrica aquest producte a base de glifosat, i és el més utilitzat en tot el món per combatre de forma no selectiva les males herbes. Gràcies a aquesta modificació genètica, l’herbicida es podrà aplicar en el mateix moment del desenvolupament de la planta de la soja.
Si bé els grups d’ecologistes i consumidors consideren aquesta varietat transgènica perillosa per a la salut humana i el medi ambient, Monsanto, les empreses extractores de llavors i el mateix Ministeri de Sanitat defensen que la seva producció i comercialització per a ús alimentari responen a totes les condicions legals de seguretat. Per defensar-ho, s’acullen a la decisió de la Comissió Europea del passat 3 d’abril, en la qual s’autoritza aquesta soja transgènica «ja que no hi ha motius per creure que tindrà efectes perjudicials per a la salut i el medi ambient».
Tot i que el glifosat no es troba entre els herbicides més tòxics del mercat, en utilitzar-lo durant el creixement de la planta transgènica fa que augmentin, segons els ecologistes, els residus que deixa a les faves de soja. Greenpeace ha denunciat que, tot i amb això, l’Administració no comprova que els residus de glifosat no superin els límits legals. Els ecologistes no ho veuen tan clar. Ricardo Aguilar, responsable de campanyes de Greenpeace, es qüestiona «com podem descartar que aquesta manipulació genètica no tindrà efectes nocius a llarg termini quan Monsanto només l’ha provada en un temps màxim de 10 setmanes en vaques, pollastres, rates i peixos, i a més utilitzant llavors que no han estat tractades amb el Roundup».
La biòloga de la fundació Acció Internacional per als Recursos Genètics Anna Rosa Martínez comprèn que s’hauria d’aplicar el principi de precaució, perquè «la inserció de gens estranys al genoma de la soja modifica inesperadament el seu metabolisme, de manera que podria augmentar el seu conegut potencial al·lergènic». Tal com reconeix Monsanto, la comercialització d’aquesta nova soja té com a objectiu augmentar les vendes de l’herbicida Roundup. «La gran promesa de la revolució biotecnològica», explica la mateixa biòloga, «era eradicar la fam en el món i no pas estimular l’ús d’herbicides».
La soja que ha arribat a Barcelona només duu un petit percentatge de soja transgènica, segons va advertir ahir a El País Armando Albert, president de la Societat Espanyola de Biotecnologia i membre de la Comissió Nacional de Bioseguretat (en funcions). I va afegir: «Com que als Estats Units s’ha autoritzat la soja transgènica i es comercialitza sense etiquetatge especial, no es diferencia de la soja tradicional i ningú no pot garantir que en una càrrega no hi hagi soja transgènica».
La major part de soja que arriba a Espanya s’usa per a la fabricació de pinsos per al bestiar. També s’utilitza en forma de farina, oli, proteïna vegetal o emulsiu, com a ingredient de més de 30000 productes alimentaris de consum habitual, com ara les galetes, la margarina, la sopa, la xocolata i els aliments infantils. En un comunicat emès ahir per Greenpeace, es criticava que fos possible «retenir durant hores activistes que només han comès el delicte de protegir la salut pública i el medi ambient» i, a la vegada, «negar els drets bàsics dels consumidors, com és saber la composició dels productes que consumeixen».
L’arribada a Espanya de les primeres càrregues d’una varietat de soja transgènica procedent dels Estats Units, l’autorització per part de la Comissió Europea de la venda de grans de blat modificats genèticament i l’oposició rotunda a la distribució d’aquests productes que han manifestat un bon nombre d’organitzacions ecologistes han obert de nou un debat sobre la conveniència o no de situar els productes transgènics al mateix nivell de control que la resta de productes abans que la població els consumeixi.
La soja en qüestió incorpora un gen que la fa més resistent a un herbicida (distribuït per la mateixa empresa que ven les llavors). El blat autoritzat és més complex: també inclou una major resistència a un altre herbicida, impedeix que els paràsits actuïn sobre la planta i potencia la seva resistència als antibiòtics. Físicament, un gen és innocu: quan ingereix el que ha utilitzat la soja per resistir a l’herbicida, qualsevol persona o animal el degradarà sense cap problema. Però els gens no solament són substàncies químiques, cadascun conté la recepta per fabricar una proteïna determinada, capaç, a la vegada, de modificar les cèl·lules. I és aquesta propietat la que aixeca la temença que un d’aquests gens arribés a estendre la resistència als antibiòtics, generés toxines perjudicials o contribuís a manifestar una malaltia.
Les temences no han de traduir-se directament en realitat. Ara bé, no es poden eludir, com si fossin invents de gent retrògrada que es nega a acceptar els beneficis del desenvolupament tecnològic. Cal fixar les normes d’etiquetatge i així no es barrejaran productes transgènics amb els obtinguts mitjançant mètodes tradicionals. El consumidor té el dret de saber què compra. La comercialització del gra nou s’ha de fer pausadament, encara que els Estats Units i determinades companyies grans tinguin presses.
Els beneficis que la societat obtindrà de les varietats noves no sembla que hagin de ser tan vitals per normalitzar-les sense reflexionar-hi detingudament.
a) Què són els aliments transgènics o les plantes transgèniques?
b)Per a què s’utilitza la soja? I el blat de moro? El seu ús, presenta algun inconvenient?
c)Quins aliments corrents contenen soja? I blat de moro?
d)El consumidor o la consumidora, pot diferenciar la soja transgènica de la que no ho és? Pot diferenciar els aliments que contenen soja o blat de moro transgènics dels que han estat elaborats amb plantes normals?
e)Quins avantatges tenen els productes transgènics?
f)Com s’obtenen i per a què s’utilitzen?
g)Quins interessos econòmics hi ha al darrere d’aquesta indústria?
h)Oposar-se al consum de soja transgènica, és oposar-se al progrés?
i)És perillós consumir aquests productes?
j)És perillosa la producció d’aquests productes?
4.21. Llegeix el text següent, que va ser publicat en el diari Menorca, i després contesta a les preguntes que hi ha a continuació:
Hi ha explotacions de l’illa de Menorca que s’han adaptat a la tècnica moderna de manipulació del bestiar. Subaida representa un d’aquests casos; es tracta d’una finca que ha pogut fer un gran esforç d’inversió i per tal d’amortitzar-lo ha hagut d’augmentar el seu ramat. Tan sols mig any enrere el bestiar d’aquesta finca es regia amb el sistema tradicional de munyir diàriament, que anava precedit d’una alimentació extra (pinsos i subproductes) i de la pràctica de l’estabulació semilliure.
La transformació que ha experimentat el funcionament de la finca rau en dos fets principals. En primer lloc, s’ha substituït l’estable per una sala de munyir moderna, i, en segon lloc, s’ha innovat la manera de subministrar l’aliment al bestiar. Actualment, aquest subministrament es duu a terme amb un Unifit, o mesclador-triturador de tots els nutrients que necessita la vaca.
Avui en dia, l’Unifit es mostra com el sistema ideal per evitar els desequilibris entre els nutrients que necessita un animal i per homogeneïtzar les racions. La solució consisteix a barrejar tots els ingredients que es donen al bestiar.
La barreja no permet que es discriminin aliments. Les racions que es proporcionen duen un «extra» que servirà d’estímul en l’alimentació. Si la vaca és capaç de menjar aliment suficient (amb una proporció adequada de greixos, matèria seca, pinsos, subproductes, etc.) per produir 30 o 35 litres diaris, els produirà.
La conseqüència pràctica és que el ramat produeix més llet durant més temps. Actualment, la mitjana de la capacitat productiva de l’explotació se situa al voltant dels 23-24 litres per vaca i dia.
A curt termini, el que es pretén és que tota la ració de volum provingui de la mateixa finca, la qual, si assolís aquest objectiu, només hauria d’adquirir de l’exterior el pinso compost i els complements.
En definitiva, així es tancaria el cicle de producció de farratges perquè les vaques puguin menjar una ració típica (sitja, fenc, palla, pinso compost i subproductes), però reduint el cost dels darrers capítols, que són els que agreugen l’economia de l’explotació. Subaida ha incrementat en un 25% el ramat de vaques en lactació, que ara és aproximadament de 100 exemplars (el total de la finca supera els 200 exemplars, entre vedelles, braves, etc.).
La sala de munyir té capacitat suficient per munyir mecànicament 16 vaques a la vegada i a més va connectada a una xarxa informàtica que es gestiona amb el programa Alfa Laval. Cada cap de bestiar duu un collaret amb el seu número d’identificació i s’han introduït a l’ordinador totes les dades pertanyents a cada vaca (producció, zels, inseminació, vacunes, malalties i fins i tot actituds considerades «rebels»). Després de munyir-les, l’ordinador processa les dades de producció del conjunt i permet conèixer amb precisió quina vaca rendeix per sota de la mitjana o, contràriament, quina pot passar al grup de productores màximes.
Una inversió com la que ha realitzat Subaida només és amortitzable a partir dels ramats amb 100 vaques en lactació.
a)L’explotació agropecuària que es porta a terme en una explotació com Subaida és força comuna. De què es tracta?
b)Compara aquesta explotació amb la naturalesa i la grandària del tipus d’activitats que es porten a terme a la teva comarca.
c)Les vaques de Subaida mengen una mescla triturada. En què consisteix una ració típica d’aquesta mescla?
d)Què diferencia la ramaderia actual de la d’abans? Què feien les vaques abans, i què fan ara? Les vaques, pasturen? Com es munyen?
e)Quines són les condicions necessàries per tal que una explotació com la de Subaida pugui ser rendible? Quin nombre mínim de vaques necessita una finca d’aquestes característiques?
f)Per què cal fer inversions tan considerables en el sector ramader? Per què les explotacions actuals han de ser més grans que moltes de les que existien anys enrere?
4.22. Llegeix aquest text i resol les qüestios que et plantegem:
A conseqüència de la recurrència dels incendis, en el bioma mediterrani trobem plantes que han evolucionat sota la pressió del foc, que presenten adaptacions encaminades a resistir-lo, i fins i tot algunes que han desenvolupat mecanismes que confereixen clars avantatges quan el foc fa acte de presència. Desenvolupar escorces gruixudes, poc inflamables, que actuen com a aïllant tèrmic (per exemple com les de l’alzina surera), proveir-se de borrons a sota l’escorça, presentar les bases llenyoses del tronc semienterrades amb capacitat per rebrotar són exemples d’adaptacions de vegetals resistents al foc. Algunes plantes fins i tot veuen afavorida la germinació de les seves llavors pel foc. Fabricar i acumular substàncies volàtils inflamables o acumular gran quantitat de virosta amb fulles i plaques de l’escorça que pengen de les branques són estratègies que es donen en algunes plantes del bioma mediterrani que contribueixen a la propagació del foc.
RAMON FOLCH (dir.), Biosfera
a) Quines són les causes dels incendis forestals?
b) Què són els vegetals piròfits? Quin paper tenen en els incendis forestals?
c) Quins avantatges, des del punt de vista de les relacions interespecífiques, suposes que poden tenir les plantes mediterrànies resistents al foc?
d) Explica el significat del fragment següent: «…plantes que han evolucionat sota la pressió del foc».
4.23. En el text següent hi ha algunes afirmacions impossibles. Destria el que és cert del que és fals i anota les teves explicacions. Després, consulta una guia de fauna i dibuixa com haurien de ser les petjades esmentades en el text.
Ahir, dia de Nadal, va caure una bona nevada! Feia molts anys que no nevava tant aquí, al poble. De bon matí, vaig sortir a fer un tomb pel bosquet que hi ha a l’altra banda de la riera. Feia goig de veure! Les branques nues de les alzines estaven totes cobertes de neu, que feia destacar el marró d’algunes fulles que, tot i estar ben seques, encara hi romanien enganxades. De verd, se’n veia poc, només el fullam dels pins i el més fosc de les heures que s’arrapen pels troncs.
Mentre caminava vaig sentir el cant d’alguns ocells –quina gana deuen passar amb tot nevat! Em va semblar identificar la garsa, el cucut i el rossinyol. Ara de garses i de gavines –diu l’avi– n’hi ha moltes més que abans. Després, de tornada, vaig veure a la vora de la riera les petjades d’alguns animalons sobre la neu. Se’n veia ben bé el rastre. Amb l’ajut d’un llibret d’animals, vaig tractar d’identificar-les. Crec que les més grosses eren de senglar. També n’hi havia de petites, que em van semblar de liró. Mentre les mirava, em va caure una pinya al cap.
Em vaig girar d’una revolada, just per veure com una ombra –un esquirol– s’esmunyia branques enllà. Gairebé al mateix temps alguna cosa va saltar dins l’aigua –quin fred! Em va semblar una granota… o potser era un peix?
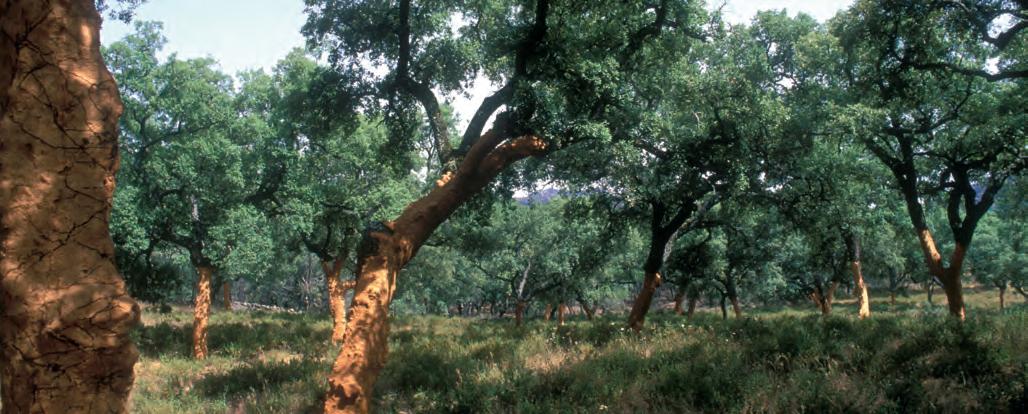
1. El canal de Suez, inaugurat l’any 1869, comunica la mar Roja amb la Mediterrània. El mapa de dalt mostra l’any d’arribada a la Mediterrània d’algunes espècies autòctones de la mar Roja. Comenta’l i digues quina influència té el canal sobre la fauna i la flora d’aquests mars.
2. Un cop llegit aquest article, publicat al Diari de Mallorca, contesta a les preguntes que hi ha a continuació:
A mitjan novembre de 1989, els alemanys Eitschberger i Stamer van detectar a Peguera, a l’illa de Mallorca, la presència d’una nova papallona diürna. Es tractava d’una densa població de l’insecte d’origen sud-africà Cacyreus marshalli, una petita papallona blava d’hàbits diürns. Les erugues d’aquesta espècie, comuna a Sud-àfrica, s’alimenten de diverses espècies autòctones de gerani. Les erugues s’introdueixen a l’interior de les tiges dels geranis, les quals excaven mentre s’alimenten dels seus teixits medul·lars, amb la qual cosa les plantes perden vigor i decauen. La situació és bastant típica: un organisme introduït accidentalment –en aquest cas molt presumiblement mitjançant el transport d’algun gerani (la majoria dels geranis cultivats provenen de Sud-àfrica)– en un hàbitat diferent del seu comença una expansió considerable gràcies al fet que en aquest ambient nou no té enemics naturals. La falta de remeis coneguts que permetin intentar la lluita biològica contra aquesta nova espècie pot transformar aquesta situació en un problema difícil de solucionar, si bé circumscrit. Mentrestant, caldrà estudiar el cicle biològic i la fenologia de l’espècie per poder ajustar al màxim els possibles tractaments.
a)El problema de la malaltia dels geranis ja no està circumscrit a Mallorca, ja que la papallona Cacy-
reus marshalli és present a bona part d’Espanya. Com hi pot haver arribat?
b)Com pot evolucionar aquesta situació?
c)Per què cal estudiar el cicle biològic i la fenologia de la papallona Cacyreus marshalli per tractar de trobar tractaments per a la malaltia dels geranis?
3. El Butlletí Oficial de l’Estat del 19 d’octubre de 1996 publicava la resolució següent de la Direcció General de Salut Pública. Un cop llegida aquesta resolució del BOE, contesta a les preguntes que hi ha a continuació:
Resolució del 9 d’octubre de 1996, de la Direcció General de Salut Pública, per la qual s’adopten mesures de protecció davant de les encefalopaties espongiformes transmissores de determinats remugants.
Primer. Es prohibeix preventivament la introducció al territori nacional de cervells d’animals ovins i caprins de qualsevol edat originaris o procedents del Regne Unit, Irlanda, França, Portugal i Suïssa.
Segon. Es prohibeix preventivament la introducció al territori nacional de la medul·la espinal, ulls, tims, amígdales, melses i intestins d’animals ovins i caprins que superin els sis mesos d’edat originaris o procedents del Regne Unit, Irlanda, França, Portugal i Suïssa.
Tercer. Pel que fa als animals ovins i caprins vius procedents del Regne Unit, Irlanda, França, Portugal i Suïssa, que se sacrifiquin a Espanya, els teixits o òrgans prohibits en els punts anteriors es destruiran, s’evitarà que entrin en la cadena alimentària humana o animal i no podran entrar en contacte amb la carn destinada al consum humà.
a)Quin és el motiu de les prohibicions expressades en el text?
b)Quin ús es fa dels teixits o òrgans esmentats en la resolució del BOE?
c)En el tercer punt de la resolució es diu que cal evitar l’entrada en la cadena alimentària humana d’aquelles parts dels animals. A quins menjars elaborats poden anar a parar? Si hi hagués cap risc, quins aliments, doncs, caldria evitar?
d)Tot i que l’any 1996 encara no s’havia detectat a Espanya cap cas de vaca boja, se sabia que hi podia haver risc de contagi. Què va fallar, doncs, perquè n’apareguessin a partir de l’any 2000?
e)Per què el bestiar boví contrau la malaltia de les vaques boges? Pot passar d’un animal a un altre? I d’un animal a una persona?
f)Quins són els denominats materials específics de risc (MER)?
4. Llegeix aquest conte, que és un reflex de la importància que tenia la matança del porc, i després escriu un relat que expliqui quan es feia, quant durava, en què consistia i els aspectes que en perduren.
Una vegada hi havia una pobra dona que tenia un fill ja bordegassot, però beneit com una sola d’espardenya. I vet aquí que una seva parenta la va convidar a la matança del porc i se n’hi va anar amb el seu fill, ja que aquest no podia fer res sense ella.
I al cap de tres dies, llestes ja les botifarres, preparats els pernils, salada la cansalada i fets els llardons, en prendre comiat dels amos de la casa, el bordegassot els va dir amb tota la seva santa ignorància i enmig de les riallades de tohom:
–Que Déu us doni salut per pregar per la seva ànima.
–Home –el va reprendre la seva mare–, això no es diu així. S’ha de dir: Déu faci que l’any vinent en pugueu matar un de més gros.
El Beneitó no va oblidar aquesta lliçó de la seva mare, i quan al cap de poc temps va anar a un enterrament, en acomiadar-se del cap de dol, li va dir:
–Déu faci que l’any vinent en pugueu matar un de més gros.
Això li va valer un rengle de patacades per part dels parents del difunt, sense tenir en compte la beneiteria del xicot.
CELS GOMIS, Zoologia Popular Catalana (text adaptat)
5. El gràfic de la pàgina següent il·lustra el cicle biològic de la processionària del pi. Estudia’l i, després, contesta a les preguntes que hi ha a continuació:
a)Quines adaptacions a la temperatura o a la humitat presenta aquest cicle biològic?
b)Per què la lluita contra les erugues no resulta gaire eficaç?
c)Quina mena d’actuació es pot dur a terme durant la primavera contra la plaga de la processionària? I durant l’estiu?
d)De quina manera es pot combatre la plaga de la processionària actuant sobre els membres adults? En quina època de l’any creus que seria millor ferho? Raona la resposta.
e)Afavorir els enemics naturals de la processionària, pot ajudar a combatre-la? Per què? Quines mesures serien adequades?
f)No és el mateix combatre la processionària en un bosc que en un jardí. Digues, en cada cas, quines de
les mesures següents serien adequades o no i per què:
–Recollir les erugues amb les mans.
–Cremar les bosses.
–Fumigar amb una avioneta.
–Fumigar des de terra.
–Posar trampes amb feromones.
g)Sembla que la processionària és una plaga més estesa ara que temps enrere. Quins factors en poden haver afavorit l’expansió?


Adults Ous Erugues Processons d’enterrament
Crisàlides (cicle anual)
Naixement de papallones
Crisàlides (cicle plurianual)
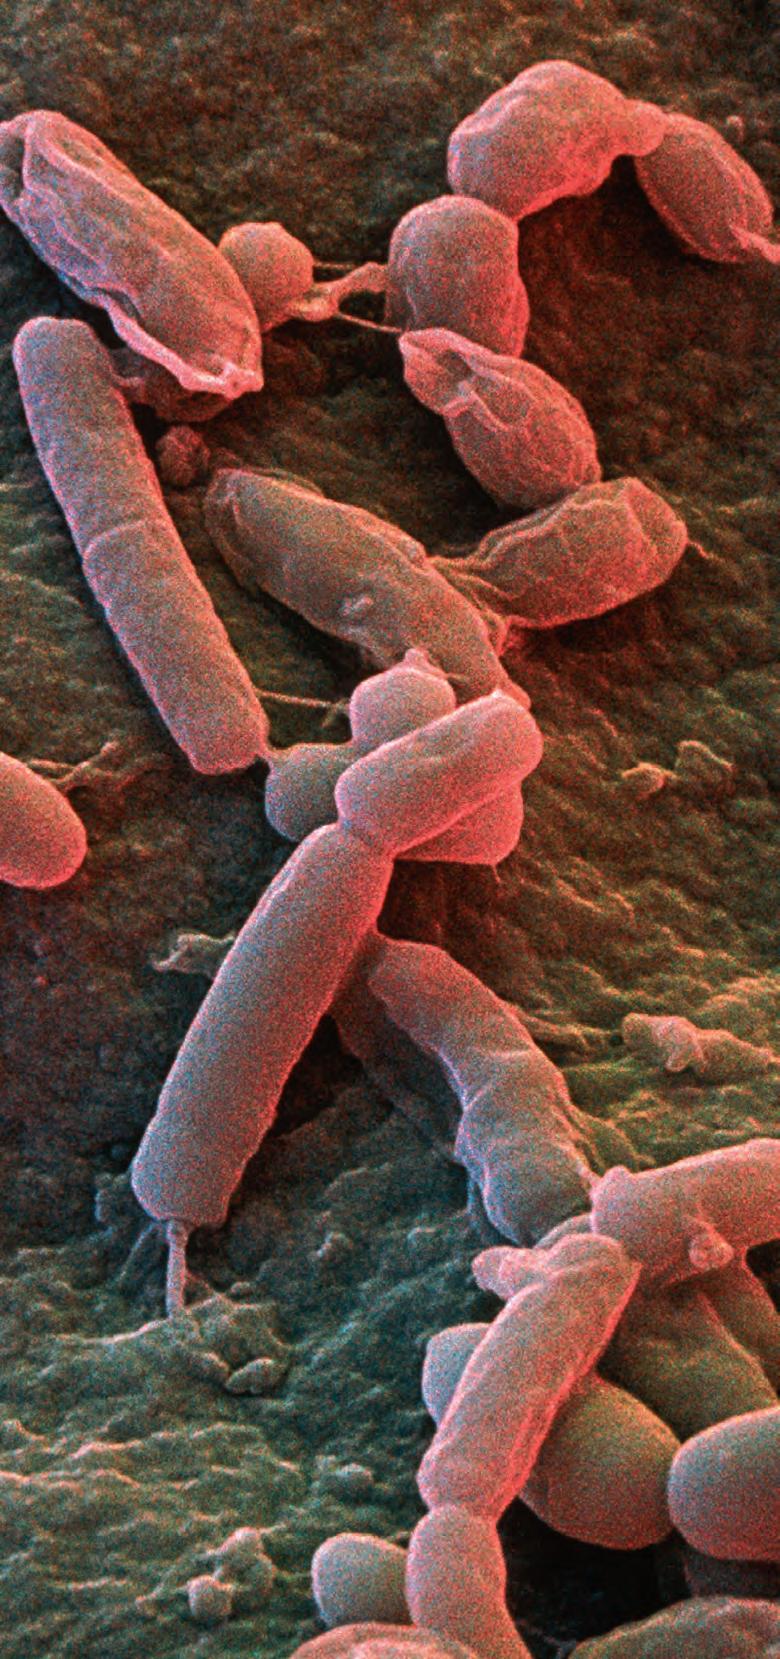
1.Les cèl·lules procariotes
2.Els virus
3.Microbis i salut
4.Els prions i les vaques
boges
5.El sistema immunològic
Exemplars de Shigella sp., bacteris causants de la disenteria, vistos a través del microscopi electrònic de rastreig.
Les cèl·lules dels bacteris i les cianofícies (una classe de bacteris fotosintètics) representen una estratègia cel·lular diferent, més senzilla, que la de les cèl·lules eucariotes. Tots dos tipus cel·lulars han tingut èxit a la Terra, ja que han aconseguit el mateix objectiu: una reproducció eficaç. Les cèl·lules procariotes evolucionen a la Terra des de fa més de 3500 milions d’anys. Fisiològicament, la cèl·lula procariota, per bé que més simple, no és «inferior» en res a la cèl·lula eucariota. Els microorganismes interaccionen de continu amb els éssers humans. De la seva activitat, com per exemple les fermentacions, en deriven beneficis. Alguns, però, ens ocasionen malalties, de les quals el nostre organisme es defensa per mitjà del sistema immunitari. En aquesta unitat també estudiarem els virus i els prions (unes partícules infeccioses descobertes recentment).
He tingut a casa unes senyores molt interessades a veure les petites anguíl·lules del vinagre. A algunes d’aquestes senyores els ha agradat tan poc l’espectacle que han promès no tornar a usar el vinagre mai més. Tanmateix, què passaria si digués a aquesta gent que en la saliva que cobreix les dents de la boca d’un ésser humà hi viuen més animals que persones en una nació?
ANTONVAN LEEUWENHOEK, Cartes (1683)
Considerats en el seu conjunt, els organismes procariotes són els més abundants, els més antics, els més variats i els que han tingut més temps per evolucionar i aprofitar plenament els hàbitats terrestres més variats i extrems, incloent-hi l’interior de molts organismes eucariotes.
Els organismes procariotes adapten les seves poblacions molt ràpidament a les condicions del medi ambient i per això han sobreviscut a nombrosos canvis en les condicions de vida.
Les cèl·lules procariotes tenen membrana plasmàtica i citoplasma, com les eucariotes, però si comparem les dues cèl·lules hi trobarem diferències molt importants:
– La mida cel·lular dels organismes procariotes varia molt, però normalment és d’1 o 2 µm. Les dimensions de la cèl·lula procariota són, per tant, molt inferiors a les dimensions de la cèl·lula eucariota, que fa habitualment entre 20 i 100 µm. Tot i així, hi ha procariotes ben curts, que fan entre 0,1 i 0,2 µm, i n’hi ha de fins a 400 µm de llarg.
– En la cèl·lula procariota, no hi trobarem orgànuls grossos, com ara el nucli cel·lular, els mitocondris, els cloroplasts, el reticle endoplasmàtic o el complex de Golgi. En canvi, sí que s’hi observen ribosomes, si bé diferents dels de les cèl·lules eucariotes. El material genètic no està embolcallat per cap membrana nuclear; no hi ha, per tant, nucli diferenciat. El citoplasma no té cap mena de citoesquelet (microtúbuls), ni té corrents citoplasmàtics, fagocitosi, pinocitosi, moviments ameboides o exocitosi, que en canvi són presents en el citoplasma dels eucariotes. En resum, no hi ha sistemes membranosos interns independents de la membrana plasmàtica.
– A diferència dels organismes eucariotes, que són tots aeròbics, els organismes procariotes presenten metabolismes molt variats; n’hi ha d’aeròbics i d’anaeròbics, i alguns són capaços de fixar el nitrogen atmosfèric.
– Pel que fa a l’ADN, en el citoplasma dels procariotes trobem un sol filament circular, el qual, contràriament al que passa en les cèl·lules eucariotes, no està protegit amb histones. De vegades, hi ha fragments d’ADN independents, anomenats plasmidis
El poder de resolució del microscopi òptic –amb un màxim d’entre 0,1 i 0,2 µm en el millor dels casos– permet veure els bacteris, encara que no se’n poden apreciar els detalls de les estructures; en canvi, la gran majoria dels virus són massa petits per poder ser vistos amb aquest tipus de microscopi. Per estudiar amb detall l’estructura dels uns i els altres, cal el microscopi electrònic.
– La divisió cel·lular es fa per fissió binària; la mitosi, pròpia dels eucariotes, és impossible en els procariotes, ja que no hi ha ni centríols ni microfibril·les. Els procariotes són principalment unicel·lulars, si bé alguns formen, per divisions repetides, masses cel·lulars sense cap mena d’especialització.
1.1.L’estructura i la morfologia de les cèl·lules procariotes
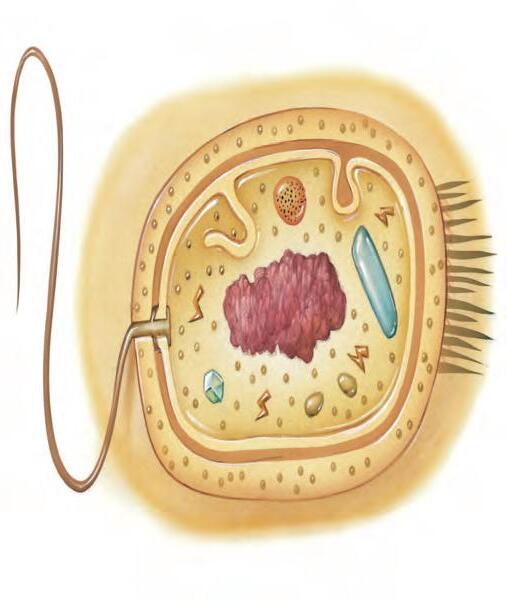
Esquema ideal d’un bacteri.
Els embolcalls que es poden trobar en un bacteri, des de l’exterior cap a l’interior, són els següents:
– La càpsula. No en tenen tots els bacteris. És una capa viscosa de gruix variable, formada per polisacàrids i polipèptids, principalment. La càpsula té les funcions de retenir aigua, crear un ambient favorable que eviti la dessecació, facilitar l’intercanvi d’ions, acumular substàncies nutritives i ajudar el bacteri a fixar-se al substrat. La presència de la càpsula és habitual en bacteris paràsits i patògens, ja que els protegeix dels atacs dels virus i dificulta que siguin atacats pels anticossos i fagocitats. Aquest tipus de bacteris sovint produeixen la càpsula en entrar en l’hoste que parasiten.
– La paret cel·lular. Es tracta d’una estructura anàloga a la paret de secreció dels vegetals. És un embolcall rígid i porós, amb un gruix de 5 a 12 nm, produït pel bacteri mateix amb secrecions de la pròpia membrana. El principal component d’aquest embolcall és la mureïna, un peptidoglicà. Segons la paret, els bacteris són grampositius (amb força mureïna) o bé gramnegatius (que tenen poca mureïna envoltada per una capa lipídica). Aquesta diferenciació influeix en la resposta dels bacteris a l’acció dels antibiòtics. La paret controla el pas d’alguns ions, però sobretot permet als bacteris viure en medis hipotònics on, si no, rebentarien; també protegeix la membrana de les altes pressions osmòtiques i hidrostàtiques, i permet als bacteris viure en els medis abissals, on la pressió té valors superiors a 1 t/cm2. Determinats antibiòtics, com la penicil·lina, ataquen i destrueixen la paret del bacteri, el qual no pot viure sense aquesta paret i mor. La paret és la responsable de la virulència de molts bacteris, perquè conté molts antígens. – La membrana plasmàtica és de tipus unitari. Es tracta d’una bicapa lipídica de 8 nm de gruix, amb fosfolípids i proteïnes, que envolta tot el bacteri. La membrana plasmàtica regula l’intercanvi de
substàncies amb el medi i sovint presenta invaginacions (els mesosomes), que augmenten la superfície interior del bacteri i compensen el fet que no tingui reticle endoplasmàtic, complex de Golgi, etc. Aquesta membrana conté molts enzims per a les necessitats metabòliques del bacteri (fotosíntesi, respiració…).
–El citoplasma no té orgànuls membranosos i vist a través del microscopi electrònic és quasi transparent, però sempre amb uns granets: els ribosomes. Els ribosomes dels procariotes són més petits que els dels eucariotes, però són idèntics als dels mitocondris i dels cloroplasts. Sempre estan lliures, mai no es troben units a membranes i a vegades s’agrupen formant polisomes. En la cèl·lula bacteriana, probablement pel seu alt metabolisme, els ribosomes són més abundants que en la cèl·lula eucariota.
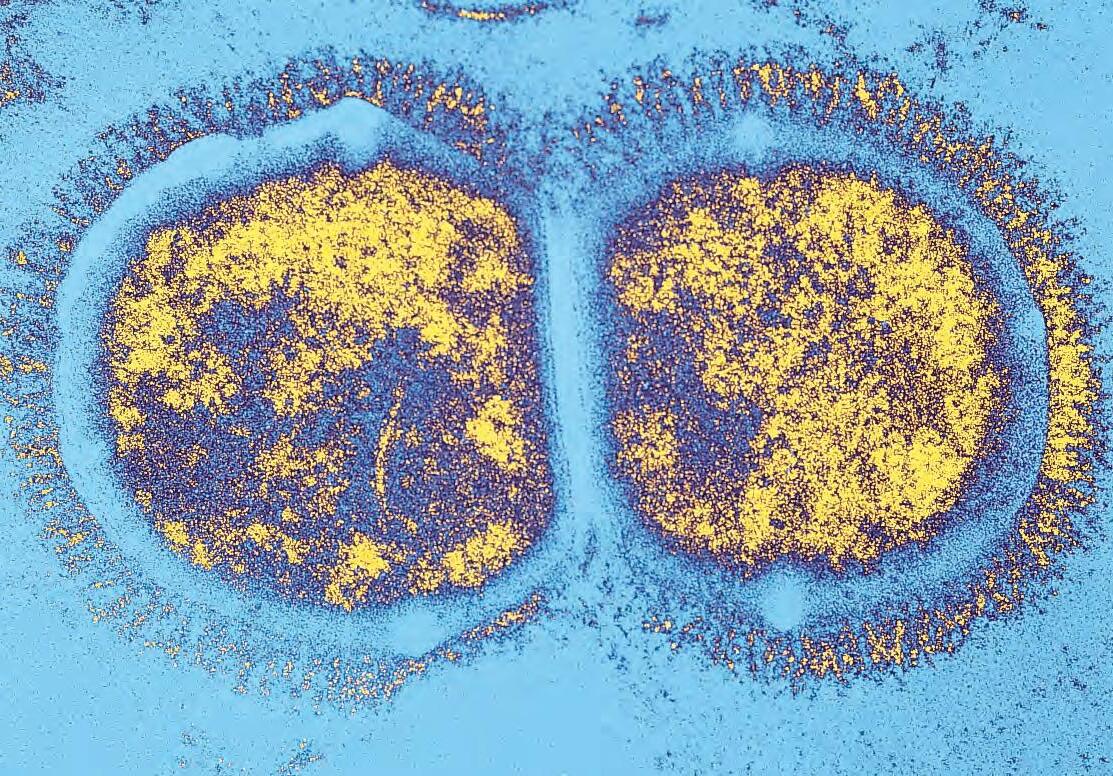
Bacteri Neisseria gonorrhoeae després de dividir-se vist a través del microscopi electrònic.
En alguns bacteris, en el citoplasma es troben altres orgànuls: cromatòfors que tenen clorofil·la, inclusions amb materials de reserva, grànuls de sofre, vacúols gasífers útils per surar en un medi líquid, partícules magnètiques útils per orientar-se…
–El material hereditari té la informació genètica del bacteri, sol estar situat a la zona central del citoplasma (nucleoide) i és un ADN bicatenari i circular que no té histones. En els procariotes, no hi ha tants enzims reparadors de l’ADN com en els eucariotes, cosa que facilita les mutacions dels bacteris. L’ADN dels procariotes està molt replegat; en l’Escherichia coli, per exemple, és gairebé 1000 vegades més llarg que la cèl·lula i es troba fixat a la membrana o bé als mesosomes.
Els bacteris també tenen sovint petits fragments d’ADN, els plasmidis, que es dupliquen independentment i solen ser circulars. Els plasmidis de l’Escherichia coli són els vectors més usats en enginyeria genètica per incorporar nou material genètic als bacteris.
–Els flagels són el mitjà de moviment d’alguns bacteris. Es tracta de filaments implantats en la membrana plasmàtica, amb la zona basal i la tija formades per una proteïna anomenada flagel·lina. Els flagels poden tenir una longitud molt més gran que la mida del bacteri. Gràcies als flagels, els bacteris poden fugir de llocs inadequats a una velocitat suficient, encara que no es desplacen amb precisió. Els flagels dels procariotes són més senzills que els de la cèl·lula eucariota. Els moviments dels bacteris com a resposta a estímuls ambientals s’anomenen tactismes i es classifiquen segons el tipus d’estímul. Així, es parla de fototactisme quan l’estímul és lluminós (pot ser positiu o bé negatiu), de termotactisme quan és calorífic i de quimiotactisme quan són les substàncies químiques del medi les que estimulen el moviment cel·lular. Aquest moviment pot ser flagel·lar, de reptació (com ara el del grup de
Imatge en fals color del bacteri Proteus mirabilis, amb nombrosos flagels, obtinguda a través del microscopi electrònic (9500x).
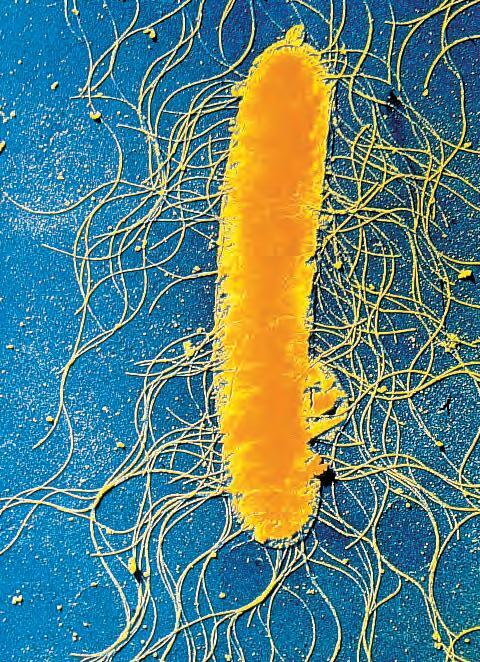
mixobacteris que formen llims sobre superfícies sòlides) o helicoïdal (per exemple, el de les espiroquetes), el qual sol ser més ràpid que el flagel·lar.
–Les fímbries o pèls són filaments proteics més curts i rígids que els flagels, i no serveixen mai per moure’s, sinó per fixar el bacteri al substrat. Tenen una estructura de canya buida, circumstància que permet l’entrada de virus i també que s’adhereixin a altres cèl·lules per intercanviar ADN. El nombre de fímbries varia segons les condicions ambientals.
Un bacteri pot tenir una de les quatre formes bàsiques següents: coc, bacil, espiril i vibrió. Els cocs poden formar agrupaments ben característics, amb formes diferents causades pels distints plans de divisió: diplococs, estreptococs i estafilococs. A més, un mateix bacteri pot canviar de forma segons les condicions ambientals. Així, per exemple, els bifidobacteris de certs iogurts només tenen la forma bífida en privació d’aliments, per la qual cosa en el iogurt no es poden distingir dels altres bacils.
Escherichia coli
L’Escherichia coli és un bacteri (del grup dels bacils gramnegatius) freqüent com a microorganisme innocu o útil a l’aparell digestiu de l’ésser humà i d’altres animals. En el cas de l’ésser humà, se sap que ajuda a evitar el creixement d’altres bacteris perillosos.
Imatge en fals color d’un bacteri amb flagels, obtinguda a través del microscopi electrònic (30000x).
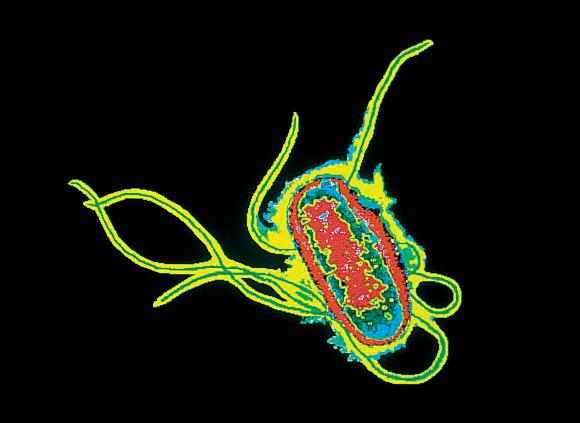
El cromosoma bacterià està format per una molècula d’ADN d’una longitud mil vegades superior a la de la cèl·lula, per la qual cosa es troba molt replegada. Aquesta molècula conté aproximadament 4 x 10⁶ parells de bases, amb una capacitat de codificació d’unes 3500 proteïnes. Conté uns 3000 gens, la majoria dels quals han estat ben localitzats i cartografiats.
A més, conté petits fragments independents d’ADN, els plasmidis, molt utilitzats en enginyeria genètica com a vectors clònics.
De les moltes varietats existents d’ Escherichia coli, poques són perilloses per a l’ésser humà. Entre aquestes varietats hi ha la que és coneguda amb el nom 0157, que pot danyar la mucosa intestinal, passar a la sang i, mitjançant una toxina, destruir els glòbuls vermells (hemòlisi) i causar danys greus al ronyó. La infecció per aquesta soca bacteriana es produeix per ingestió d’aliments contaminats (carn, llet) i cuinats inadequadament. També es pot transmetre de persona a persona.
L’ Escherichia coli és, sens dubte, un dels microorganismes més utilitzats en biologia i genètica molecular. Requereix un medi de cultiu molt simple i es reprodueix ràpidament (el temps de generació oscil·la entre 20 minuts i una hora), la qual cosa fa possible obtenir un gran nombre de cèl·lules en poc temps.
Els bacteris presenten quatre morfologies bàsiques, que reben les denominacions de cocs, bacils, espirils i vibrions.
Els cocs són de forma esfèrica i poden trobar-se aïllats o agrupats en parelles (diplococs, com ara la Neisseria gonorrhoeae, agent productor de la gonorrea o blennorràgia), en cadenes (estreptococs, com ara l’Streptococcus pneumoniae, agent productor de la pneumònia) i en raïms irregulars (estafilococs, com per exemple l’Staphylococcus aureus, que origina la formació de furóncols a la pell).
Els bacils (com ara el Mycobacterium tuberculosis o bacil de Koch, agent productor de la tuberculosi) tenen forma cilíndrica allargada.
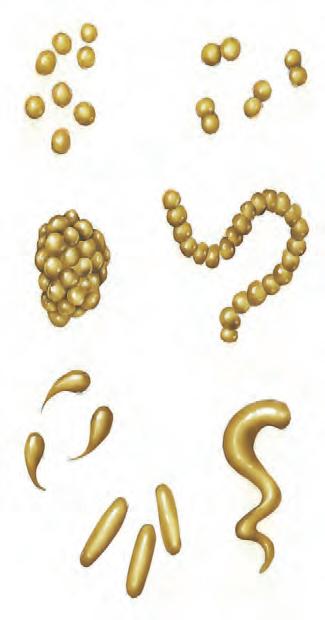
Els espirils (com ara el Treponema pallidum, agent causant de la sífilis) tenen forma de tirabuixó. Els vibrions (com ara el Vibrio cholerae, agent productor del còlera) semblen cilindres curts, corbats i afuats com una coma.
El metabolisme és el conjunt de reaccions químiques que tenen lloc en un organisme. Els bacteris tenen més diversitat metabòlica que els eucariotes. Algunes de les raons que poden explicar aquest fet són les següents:
a)Moltes espècies de cèl·lules procariotes que encara sobreviuen són de naturalesa molt diversa i han conegut circumstàncies ben distintes.
b)Les cèl·lules procariotes muten i intercanvien l’ADN més fàcilment que les eucariotes, cosa que els permet modificar els enzims i el metabolisme més ràpidament.
c)La relació entre la superfície i el volum dels procariotes és molt alta, i això fa que el seu metabolisme sigui molt ràpid i puguin aprofitar recursos que els eucariotes no poden aprofitar.
L’espiroqueta Leptosira interrogans és un bacteri patogen causant de la leptospirosi humana i animal.
Els bacteris poden degradar una àmplia varietat de productes orgànics a un ritme molt elevat. Per això són importantíssims com a descomponedors de la matèria orgànica. Ara bé, hi ha productes químics orgànics creats artificialment que els bacteris tan sols aconsegueixen degradar amb gran dificultat o que deixen intactes: plàstics, molts detergents, insecticides, herbicides, fungicides… La permanència d’aquests productes és encara més duradora en ambients anaeròbics, com ara els fons dels llacs. Els detergents no biodegradables, per exemple, passen a l’aigua potable a través de les depuradores d’aigües residuals i la contaminen. Aquests són els temps de permanència en el sòl d’alguns insecticides: Aldrín, més de 9 anys; Clordà, més de 12 anys; DDT, 10 anys, i HCH, més d’11 anys. Alguns herbicides, com ara el Monuron o el Simazeno, hi romanen de 2 a 3 anys, i alguns fungicides, com per exemple el PCP i el Zineb, més de 5 anys i més de 75 dies, respectivament.
Avui dia es procura que aquests tipus de productes siguin biodegradables, però algunes substàncies usades anys enrere ja han provocat problemes greus i difícilment remeiables.
1.3.Classificació dels procariotes segons la font d’energia
En els organismes superiors, un mateix aliment, com ara la glucosa, subministra simultàniament el carboni necessari i l’energia per al metabolisme. En els bacteris, en canvi, aquests dos subministraments sovint van separats, la qual cosa origina una gran varietat de metabolismes.
L’energia que els procariotes utilitzen per al metabolisme pot ser de naturalesa química o lumínica. Pel que fa al carboni, pot provenir d’una font orgànica o inorgànica. Tenint en compte això, els diversos metabolismes bacterians es poden classificar de la manera següent:
– Quimioautòtrofs. Obtenen l’energia dels enllaços químics, partint de molècules inorgàniques. En lloc d’usar compostos orgànics, poden oxidar el ferro, el sofre o el manganès per obtenir l’energia que necessiten.
– Quimioheteròtrofs. Obtenen l’energia dels enllaços químics, però partint de molècules orgàniques, com ara la glucosa.
– Fotoautòtrofs. Tal com indica el prefix, obtenen l’energia de la llum, no dels enllaços químics, i usen com a donadors d’electrons substàncies com ara l’aigua (H2O) o bé l’àcid sulfhídric (H2S).
– Fotoheteròtrofs. Obtenen l’energia de la llum, no dels enllaços químics, i usen com a donadors d’electrons substàncies orgàniques, com ara l’acetat.
Però si pretenem classificar millor els metabolismes bacterians, haurem de precisar, a més de la font d’energia, la font de carboni que utilitzen. Hi ha bacteris autòtrofs que usen CO2 per obtenir carboni, com fan les plantes, mentre que els heteròtrofs fan servir altres compostos orgànics com a font de carboni.
Respecte a l’ús de l’oxigen, hi ha procariotes aerobis obligats, que es moren si els falta l’oxigen, i altres de facultatius, ja que poden fer fermentacions, encara que creixen millor amb oxigen. També hi ha bacteris aerobis microaeròfils, com ara els de l’àcid làctic, que necessiten baixes pressions parcials d’oxigen. En canvi, els anaerobis mai no usen oxigen en el seu metabolisme. Entre aquests procariotes, distingim els anaerobis aerotolerants, als quals l’oxigen no fa cap mal, i els anaerobis obligats, que només poden viure sense oxigen.
D’altra banda, només alguns bacteris, per exemple els del gènere Rhizobium, poden viure fixant el nitrogen atmosfèric en forma d’amoni. En una fàbrica, calen pressions de 300 atmosferes com a mínim i 500 °C per fixar el nitrogen. Cap animal o planta, ni cap altre microorganisme, no pot fer una cosa semblant. Aquest prodigi tan sols és possible perquè aquests bacteris han desenvolupat les nitrogenases, uns enzims capaços de realitzar moltes reaccions químiques que, en cas contrari, serien molt lentes o s’aturarien.
1.4. La reproducció i la sexualitat en els procariotes
Els bacteris es reprodueixen asexualment autoclonant-se. En condicions òptimes, els bacteris poden dividir-se cada 20 minuts. Si seguissin aquest ritme, i a partir d’un sol bacteri, al cap de dotze hores hi hauria tants bacteris com éssers humans, i al cap de dos dies s’arribaria a l’astronòmica xifra de 2144 bacteris. Aquesta formidable capacitat reproductora els permet explotar ràpidament els recursos disponibles.
Després d’un període de creixement, el bacteri copia els seus gens i la resta de les parts de la cèl·lula i seguidament es divideix per la meitat, en un procés anomenat escissió binària o escissiparitat. Es generen així dues noves cèl·lules genèticament idèntiques a l’únic progenitor. Cada bacteri fill és una còpia tridimensional de la progenitora. Es tracta d’un mecanisme reproductor asexual.
En reproduir-se, els bacteris poden presentar formes de resistència i formes de dispersió. Quan les condicions són desfavorables, poden recollir l’ADN en una espora (esporulació) que sobreviu fins que millorin les condicions ambientals. En aquest estat de vida latent, que pot durar anys, els bacteris resisteixen millor la calor, la dessecació i les radiacions. Quan les condicions tornen a ser favorables, el bacteri recupera la forma habitual.
Els bacteris van desenvolupar les primeres formes de transferència de gens entre individus, és a dir la sexualitat. Es tracta sempre d’un mecanisme de transmissió horitzontal, en el qual un bacteri donant traspassa un, uns quants o tots els seus gens a un altre bacteri, sense que això impliqui la producció de descendència.
Els animals i les plantes es reprodueixen sexualment i reben la majoria dels gens nous al començament del cicle vital, en el moment de la fecundació. En els animals i les plantes la sexualitat i la reproducció tenen lloc entre individus de la mateixa espècie, mentre que en el sexe bacterià els gens donants d’un bacteri poden ser rebuts per un bacteri molt diferent. El bacteri recombinant resultant d’un acte sexual (intercanvi de gens entre un bacteri donador i un de receptor) tindrà els gens propis i els gens de l’altre bacteri. Cal destacar que el bacteri receptor no s’ha reproduït, sinó que únicament ha adquirit nou material genètic.
Reproducció bacteriana per fissió o divisió binària. Les primeres tres fases corresponen a la replicació de l’ADN. Les tres fases següents corresponen a la formació de dues cèl·lules filles.
Principals mecanismes d’intercanvi de gens (recombinació genètica) en els bacteris
Progenitors
Donador
Procés
Receptor
Conjugació
Consisteix en la incorporació d’un fragment d’ADN d’un bacteri donador per part d’un bacteri receptor. A l’interior d’aquest bacteri receptor l’ADN pot recombinar-se amb l’ADN propi.
La conjugació implica un contacte cel·lular: entre els dos bacteris s’estableix un pont (fímbria) a través del qual passen els gens en l’intercanvi.
Transducció
En la transducció bacteriana un virus (agent transmissor) inocula en un bacteri el seu ADN i part de l’ADN de l’últim bacteri parasitat.
Bacteri recombinant
Transformació
Un bacteri incorpora en el seu material genètic fragments d’ADN que estaven lliures en el medi, molt sovint a causa de la lisi d’altres bacteris.
La conjugació i la transducció són els principals sistemes de resistència bacteriana, ja que permeten incorporar de manera ràpida els canvis del material hereditari. Amb els intercanvis de fragments d’ADN, els bacteris tenen accés a totes les adaptacions de l’univers bacterià. Per això, els bacteris poden fer front ràpidament a canvis ambientals i a situacions crítiques. Els grans organismes eucariotes tardarien milions d’anys a adaptar-se a situacions a les quals els bacteris s’adapten en uns quants anys.
Organització ideal d’una cianofícia.
Grànul de reserva Ficobilisomes
Vacúol gasífer Filament d’ADN Paret cel·lular
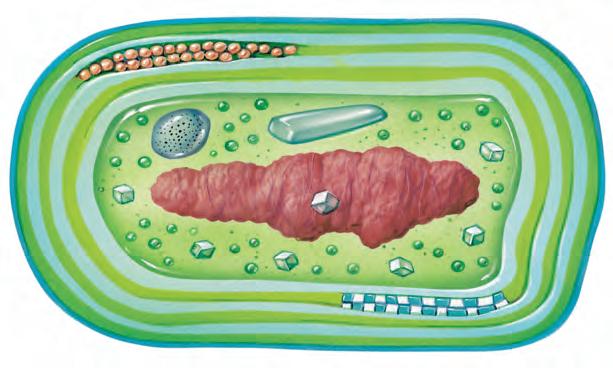
1.5. Les cianofícies
Les cianofícies, anomenades també algues blaves o cianobacteris, són procariotes que es troben sovint en els sediments, surant en els rius i els mars, o en ambients on les condicions de vida són extremes, com ara aigües termals, llocs molt salats o molt contaminats… Les cianofícies viuen aïllades o en colònies globulars o filamentoses.
Aquests microorganismes fan una fotosíntesi similar a la que fan els eucariotes, encara que poden captar la llum propera
a l’infraroig gràcies a uns pigments que els eucariotes no tenen. L’antiguitat de les algues blaves és d’uns 3000 milions d’anys, tal com demostren els estromatòlits, unes roques formades per l’activitat de les cianofícies. Probablement, són les productores de bona part de l’oxigen que ara hi ha a l’atmosfera terrestre.
Hi ha uns bacteris que són ben diferents de la resta, amb unes característiques bioquímiques que permeten assegurar que són antiquíssims, supervivents de l’època en què l’atmosfera terrestre no tenia oxigen lliure. S’anomenen arqueobacteris i tenen una importància ecològica notable.
Alguns d’aquests bacteris suporten condicions d’acidesa i de temperatura molt altes; d’altres viuen en condicions halòfiles extremes; i d’altres, finalment, són metanògens (és a dir, redueixen el CO2 a metà). Les diferències bioquímiques respecte a la resta dels bacteris (eubacteris) fan que els arqueobacteris es puguin considerar un grup molt primitiu, a part de la resta dels procariotes.
5.1. Per què els bacteris, malgrat la seva impressionant capacitat de reproducció, no proliferen més encara? Les raons que has donat per respondre a la pregunta, servirien per a altres espècies d’éssers vius?
5.2. Explica el concepte de bacteri grampositiu i bacteri gramnegatiu. Esbrina què vol dir que els cultius vells d’alguns bacteris són gramlàbils.
5.3. Els bacteris presenten formes de sexualitat; però, els serveixen per multiplicar-se, com en els animals? Quina utilitat tenen aquestes formes de sexualitat en els bacteris? La tenen també en els animals i les plantes?
5.4. Explica què signifiquen els termes aerobi, anaerobi, fímbria, càpsula, autòtrof, estromatòlit i vibrió.
5.5. Escriu alguna de les característiques que fan que els arqueobacteris siguin diferents de tota la resta de bacteris. Per què se suposa que els arqueobacteris són tan antics?
5.6. La fotosíntesi bacteriana és distinta de la dels eucariotes. Busca informació sobre la fotosíntesi bacteriana i compara-la amb la de les cianofícies i amb la dels eucariotes.
5.7. En una anàlisi rutinària, la farmacèutica d’un poblet ha trobat que l’aigua d’una font molt concorreguda i propera al poble conté Escherichia coli. Ràpidament avisa l’Ajuntament. Explica per què ho fa. Què indica la presència d’Escherichia coli? Quines conseqüències pot tenir en la salut de les persones que han consumit l’aigua d’aquella font?
5.8. Explica en què es diferencien les anomenades algues cianofícies de les veritables algues.
5.9. Se sap que hi ha bacteris que viuen fins gairebé els 3000 m de profunditat a l’interior de la Terra. Aquests bacteris, respiren? S’alimenten? Depenen de l’energia que ens arriba del sol? D’on obtenen l’energia del metabolisme?
5.10. Els bacteris presenten una gran diversitat metabòlica i poden fer servir formes d’energia distintes. Tot i això, fins i tot per a ells algunes energies no són aprofitables. Digues quines d’aquestes energies són aprofitades directament pels bacteris i quines no:
a)L’energia geotèrmica (calorífica).
b)L’energia elèctrica o magnètica.
c)La radiació lumínica.
d)L’energia nuclear.
e)L’energia eòlica.
5.11. Hi ha petits ecosistemes, autèntics oasis en les despoblades zones abissals del fons dels oceans, que no depenen del sol. Els organismes productors d’aquests ecosistemes usen una energia que no ve de la fotosíntesi de les algues ni plantes. Busca informació sobre la qüestió i redacta’n un breu informe.
Els virus són a la frontera que separa els éssers vius de la matèria inerta. No estan formats per cèl·lules, no tenen moviment propi, no s’alimenten ni poden reproduir-se de forma independent. Només donen senyals de vida quan envaeixen alguna cèl·lula. La seva mida és molt petita, generalment molt inferior a la dels bacteris. Són paràsits intracel·lulars obligats. Tots els éssers vius, inclosos els bacteris, poden ser parasitats pels virus.
Els virus van ser descoberts l’any 1892, quan el botànic rus Dimitri Ivanoski observà que l’agent causal d’una malaltia que afectava les fulles de la planta del tabac travessava els filtres de porcellana, que eren, en canvi, útils per retenir els bacteris. A més, els causants d’aquesta
malaltia de les fulles eren tan petits que es feien invisibles al microscopi òptic, cosa que no passa amb els bacteris.
Aquests organismes tan petits es van anomenar virus filtrables. Amb la microscòpia electrònica i altres tècniques, el coneixement de l’estructura i la composició dels virus ha millorat molt.
Les característiques principals dels virus són les següents:
– La falta d’estructura cel·lular: la seva organització és molt més senzilla que la de les cèl·lules procariotes.
– La manca de metabolisme propi: no s’alimenten, no respiren i no fan la fotosíntesi.
– El fet de ser paràsits intracel·lulars obligats: només es reprodueixen a l’interior de les cèl·lules.
Aquesta imatge obtinguda per mitjà del microscopi electrònic mostra nombrosos virus bacteriòfags atacant un bacil Escherichia coli (58000x)
Els components essencials dels virus són l’àcid nucleic i les proteïnes. Altres components, com ara els lípids i els polisacàrids, no sempre hi són presents. Els virus sempre contenen un àcid nucleic (ADN o ARN), però mai tots dos simultàniament. L’ADN i l’ARN poden ser monocatenaris o bicatenaris; generalment, són monocatenaris els virus d’ARN i bicatenaris els virus d’ADN. Els filaments d’ARN són sempre lineals, mentre que els d’ADN poden ser lineals o circulars. La grandària de l’àcid nucleic és típica per a cada tipus de virus. Els virus també tenen, en la seva composició, algunes proteïnes, les quals són característiques per a cada tipus de virus.
El diàmetre d’un virus sol tenir entre 20 i 300 nm, mentre que la mida dels bacteris, molt més gran, es mesura en micròmetres (µm). L’àcid nucleic del virus està protegit per una estructura proteica anomenada càpsida. La càpsida està formada per capsòmers, cadascun dels quals està format, al seu torn, per una proteïna, si bé poden ser més proteïnes idèntiques. A la càpsida hi ha receptors específics que serveixen perquè el virus es fixi a les cèl·lules que parasita. Alguns virus presenten, a més, una mena de coberta externa a la càpsida formada per glúcids, lípids i proteïnes.
Virus de l’herpes simple, un exemple de virus icosaèdric.
2.3. La classificació dels tipus de virus
Hi ha diferents criteris per classificar els virus: segons les malalties causades, segons el tipus d’àcid nucleic, segons l’organisme hoste, segons si tenen o no embolcall extern, etc. L’estructura dels virus, concretament la manera com es disposen els capsòmers de la càpsida, és un dels criteris més usats per classificar-los. Des d’aquest punt de vista, els virus poden ser:
– Helicoïdals. Són uns virus allargats, amb els capsòmers que embolcallen l’àcid nucleic disposats en hèlix. Un exemple de virus helicoïdal és el del mosaic del tabac.
– Icosaèdrics. N’és un exemple el virus de la grip, amb una càpsida que recorda aquesta forma (20 triangles equilàters units de cinc en cinc).
– Complexos. Són d’aquest tipus de virus els bacteriòfags que infecten els bacteris. Tenen una mena de cap i una beina que els serveix per injectar l’àcid nucleic dins el bacteri, una placa basal on hi ha proteïnes enzimàtiques per dissoldre la paret bacteriana i unes «espines» per fixar-se a la paret del bacteri.
La partícula vírica completament formada s’anomena virió
Quan un virus infecta una cèl·lula, només hi penetra la part interior del virus.
ADN a l’interior
i espines de la cua
Els diferents tipus de virus.
2.4. Cicles dels virus. La fisiologia i la reproducció
Com que els virus no estan formats per cèl·lules no es divideixen. La seva forma de perpetuació passa per la replicació, que portarà a terme alguna cèl·lula que el virus parasitarà. A diferència dels paràsits ordinaris, no parasita per alimentar-se, sinó per replicar-se. El seu cicle vital té dues fases alternes que es van encadenant.
En la primera fase, el virus és una part infecciosa inerta que està fora de la cèl·lula i té l’estructura descrita d’àcid nucleic i proteïnes. Quan els virus es presenten sense cap mena d’activitat, s’anomenen virions i n’hi ha alguns que es poden cristal·litzar.
En la segona fase, el virus entra en una cèl·lula i el seu àcid nucleic es replica i es tradueix en proteïnes, cosa que es pot produir immediatament (cicle lític) o de manera retardada (cicle lisogènic).
Els virus són molt selectius a l’hora de triar la cèl·lula hoste. Així, els bacteriòfags són els virus específics dels bacteris.
El sistema de fixació i penetració, en canvi, varia segons els virus. Un bacteriòfag, el qual ha de travessar la paret bacteriana, injecta l’àcid nucleic mitjançant contraccions de la càpsida, la qual, però, no entrarà dins el bacteri. En canvi, els virus dels vegetals i dels animals, com que no tenen cap sistema d’injecció, han d’utilitzar altres mètodes per entrar en els organismes: a través de les ferides, gràcies als insectes que fan de vectors dels virus per infectar altres organismes, etc. Aquests virus duen un embolcall que es fusiona amb la
Cromosoma bacterià
Bacteri
Integració de l’ADN del virus en el cromosoma bacterià
Pròfag
Divisió cel·lular
del virus
Inducció
Bacteriòfag
Superfície del bacteri
Bacteriòfag damunt la membrana d’un bacteri.
Via lisogènica
Bacteris lisogènics
L’ADN integrat del virus es replica amb el cromosoma bacterià
Síntesi de proteïnes i ADN per formar nous virions
Unió dels components dels nous virions
Alliberament dels nous bacteriòfags per lisi cel·lular
Via lítica
Esquema comparatiu dels cicles lític i lisogènic.
membrana plasmàtica de l’hoste. En aquest cas, dins la cèl·lula hoste no entra tan sols l’àcid nucleic del virus, sinó també la càpsida, la qual, una vegada digerida, deixa lliure l’àcid nucleic. De vegades, el virus aconsegueix de ser fagocitat i entrar així, ben fàcilment, a la cèl·lula hoste.
Quan qualsevol virus ja és dins la cèl·lula, s’aprofita de la maquinària bioquímica i de les matèries primeres de la cèl·lula hoste per fer còpies del material genètic i de l’àcid nucleic propis. A continuació, es fan còpies de les proteïnes necessàries per fer una nova càpsida i d’alguna altra proteïna (enzim) que servirà per trencar la membrana de la cèl·lula i alliberar els nous virus. En aquesta fase, tot el citoplasma de la cèl·lula és ple de materials vírics, que s’aniran acoblant per formar les noves partícules víriques o virions.
L’alliberament dels virus provoca sempre la lisi cel·lular si es tracta d’un bacteri. Es diu que el virus ha fet un cicle lític. En el cas dels animals, els virus sovint s’escapen de la cèl·lula arrossegant part de la membrana. En el cas dels vegetals, els enzims vírics han de digerir-ne la paret. Les cèl·lules no acostumen a sobreviure a la infecció.
Quan els virus penetren en una cèl·lula hoste, no sempre inicien el cicle lític, que és el cicle de multiplicació normal, sinó que a vegades fan un cicle que s’anomena lisogènic. Durant aquest cicle, l’àcid nucleic del virus es lliga a l’ADN cel·lular i es reprodueix amb ell. Aquests virus atenuats provoquen transformacions cel·lulars que amb el temps poden ocasionar tumors en plantes i animals.
En els bacteris, el virus hi reconeix certes zones de l’ADN bacterià i s’hi incorpora. Durant un temps, l’ADN víric no es transcriu, però es duplica junt amb el cromosoma bacterià, de manera que s’hereta de generació en generació, fins que les condicions ambientals indueixin el cicle lític. Això causa greus problemes a les indústries que utilitzen estirps de bacteris en la producció d’antibiòtics, en les fermentacions làctiques, etc.
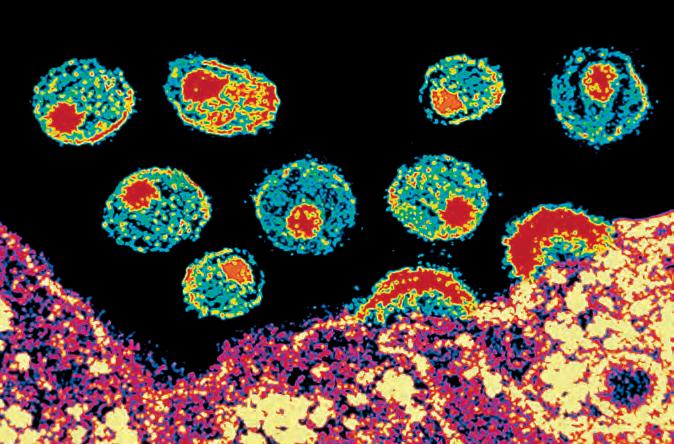
El cicle vital (cicle lític) dels virus
El cicle lític de molts virus inclou les fases següents:
a) Fase de fixació del virus a la membrana de la cèl·lula hoste. De vegades, aquesta fixació es produeix mitjançant enllaços químics entre les proteïnes de la càpsida i les de la membrana cel·lular. Altres virus, com ara nombrosos bacteriòfags, presenten fibres caudals per a la fixació.
b) Fase de penetració del virus, i més en concret de la molècula d’àcid nucleic, a l’interior de la cèl·lula hoste. De vegades, el virus indueix la seva fagocitosi per la cèl·lula hoste, i una vegada al seu interior es trenca la càpsida i s’allibera l’àcid nucleic. En el cas de certs bacteriòfags, un enzim ataca la paret bacteriana i permet la injecció del genoma víric. La penetració implica la desaparició del virus com a entitat independent.
c) Fase d’eclipsi (anomenada així perquè els virus no són visibles). Es produeix la desorganització total de la cèl·lula parasitada, amb aturada de la biosíntesi normal. L’activitat de la cèl·lula parasitada, dirigida ara per l’àcid nucleic víric, es destina a replicar el genoma del virus i a sintetitzar les proteïnes de la càpsida.
d) Fase de maduració i d’engalzament, durant la qual es reagrupen els capsòmers per formar noves càpsides, cadascuna de les quals envoltarà una molècula de l’àcid nucleic. Es formen nous virions.
e) Fase d’alliberament dels virions. De vegades, la sortida dels virions es produeix per la lisi o destrucció de la cèl·lula hoste. A vegades, els virions s’expulsen a partir de vesícules, com altres continguts del citoplasma, sense lisi o destrucció de la cèl·lula, malgrat que la cèl·lula no acostuma a sobreviure a causa de les alteracions provocades en el seu metabolisme i de la destrucció del seu ADN.
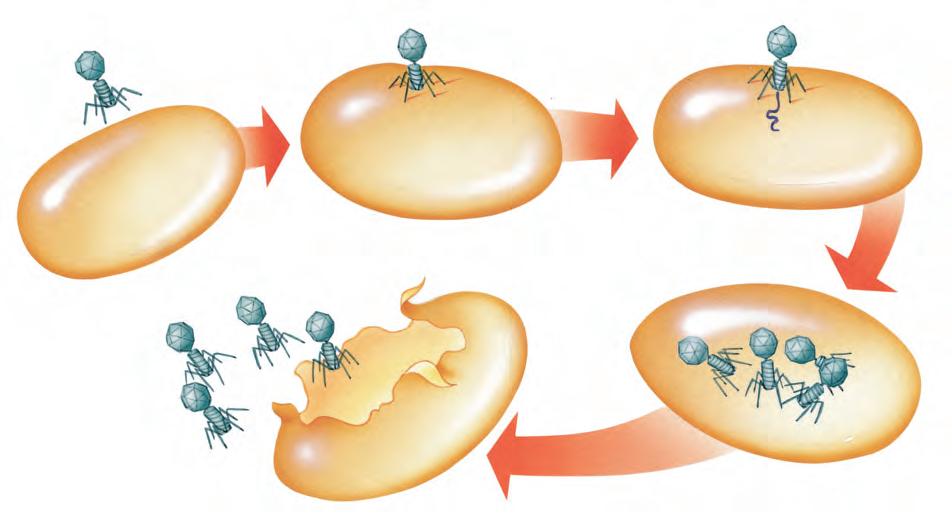
Els virus causen malalties a l’ésser humà i a altres éssers vius. El virus de la febre aftosa, que ataca el bestiar, n’és un exemple. Cada virus té la seva manera particular de transmetre’s.
2.5. L’origen i l’evolució dels virus
Si bé hi ha moltes maneres de classificar els virus, com ja s’ha dit anteriorment, resulta molt difícil fer-ne una divisió basada en la seva evolució (classificació filogenètica), entre altres raons perquè els virus no deixen fòssils.
Els virus no poden ser les estructures biològiques més primitives, ja que per reproduir-se han de menester les cèl·lules. Podria ser que s’originessin en segments d’ADN (gens) sortits d’una cèl·lula, els quals per reproduir-se necessitaven trobar una altra cèl·lula hoste; o bé podrien derivar de cèl·lules paràsites que han perdut la major part de les estructures.
Segurament, els virus han tingut un paper molt important en l’evolució, ja que poden transferir gens d’uns organismes a uns altres. Hi ha una sèrie de fenòmens que serien molt difícils d’entendre en cas que no hi haguessin intervingut els virus. Alguns d’aquests fenòmens són els següents: el fet de trobar hemoglobina en la soja, hormones femenines en els dàtils, serotonina o noradrenalina –que són neurotransmissors– en alguns vegetals, etc.
El virus de la febre aftosa és un picornavirus. Només té 28 nm de longitud, però és molt contagiós i presenta una gran variabilitat genètica.
COM S’ADQUIREIX
– Per inhalació: amb l’ajuda del vent es pot traslladar fins a 60 km de distància.
– Per ingestió: sobreviu molt de temps en el menjar, en les escombraries, en els cabells, en el pèl o en la roba.
SÍMPTOMES I TRANSMISSIÓ
Després d’un període d’incubació de 2 a 14 dies, a la boca i a les peülles de l’animal infectat surten unes butllofes que es trenquen després de 24 hores. El trencament de les butllofes permet que els virus s’escampin. Cal tenir present que de l’alè d’un porc infectat poden sortir fins a 400 milions de virus cada dia.
ANIMALS INFECTATS
Vaca, porc, be, cabra, cérvol, ren, eriçó, visó, búfal, elefant, girafa, antílop, llama, camell. El virus de la febre aftosa no ataca el cavall i en l’ésser humà la malaltia es manifesta de forma molt poc virulenta.
MESURES SANITÀRIES
La mortalitat és del 5% dels animals afectats i no hi ha cap tractament. Cal crear una zona de seguretat de vuit quilòmetres com a mínim i mantenir-hi un aïllament d’uns quants mesos.
A més, s’han de sacrificar tots els animals que es trobin dins del perímetre de la zona de seguretat.
2.6. El virus de la sida
Com la resta de virus, el VIH és un paràsitintracel·lular obligat, és a dir, únicament pot sobreviure i replicar-se a l’interior de cèl·lules vives, aprofitant-se de les seves estructures i destruint-les. El virus de la sida parasita i destrueix preferentment un tipus de glòbuls blancs, els limfòcits T4, que tenen un paper decisiu en la resposta immunitària humana. Altres cèl·lules parasitades són els macròfags, les cèl·lules nervioses i les de la mucosa intestinal.
Es tracta d’un virus de tipus ARN, ja que el seu material genètic o genoma està format per dues fibres d’àcid ribonucleic.
Pertany al grup dels retrovirus que tenen a la nucleocàpsida l’enzim transcriptasa inversa o retrotranscriptasa. Un cop el VIH penetra en una cèl·lula, aquest enzim transcriu l’ARN víric en ADN, que després és integrat en l’ADN de la cèl·lula hoste. Aquest procés de transcripció és invers al que es produeix a les cèl·lules.
Es coneixen dos tipus de virus de la sida, el VIH-1 i el VIH-2. Aquest segon té una distribució restringida a certes zones de l’Àfrica occidental, és de transmissió més difícil que el VIH-1 i és menys patogen, ja que transmet la malaltia amb menys freqüència i amb menys rapidesa. Sembla, d’altra banda, que la infecció per VIH-2 provoca una certa resistència contra el VIH-1.
Durant el procés de replicació, el virus de la sida experimenta mutacions freqüents, és a dir, «errors» en l’ARN que es manifesten en forma de canvis en les proteïnes víriques.
En un mateix malalt es troben nombroses varietats del virus. Aquesta característica és la causant de la gran resistència del virus de la sida als medicaments i de la gran dificultat que hi ha per desenvolupar vacunes.
Amb les dades de què es disposa, s’accepta que el VIH es va originar a partir de virus semblants que, des de fa molt temps, afecten diversos primats africans (com ara la mona verda africana), sense causar-los trastorns importants. No hi ha cap dada que permeti afirmar que el VIH hagi estat fabricat artificialment en el laboratori.
La major part dels mamífers emprats en l’experimentació mèdica no queden afectats pel virus de la sida, la qual cosa dificulta l’estudi experimental del VIH.
Nucli (conté el material genètic del virus i diferents enzims)
El virus VIH és una partícula gairebé esfèrica, amb un diàmetre d’entre 80 i 100 nanòmetres, formada per un embolcall extern i per una zona central o nucleocàpsida que conté el genoma víric.
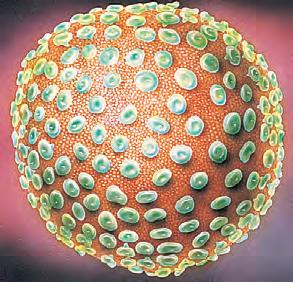
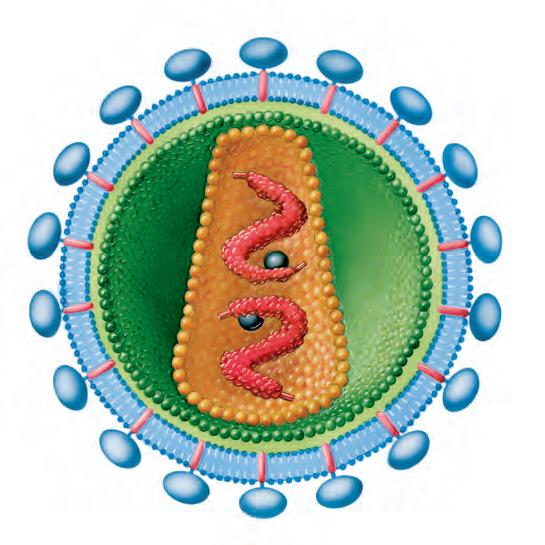
Transcriptasa inversa o retrotranscriptasa: enzim que, un cop el virus ha penetrat en la cèl·lula hoste, transcriu l’ARN víric en ADN que s’incorpora al genoma de la cèl·lula infectada
Proteïna p41, immersa en la bicapa lipídica
Proteïnes de la matriu, p17 i p18
5.12. Malgrat que Dimitri Ivanoski no hagués vist mai els virus, es considera que en va ser el descobridor. Com és possible, això?
5.13. Pot un plasmidi penetrar en una cèl·lula bacteriana? I en una altra mena de cèl·lula? La infecció, podria arribar a una cèl·lula eucariota?
5.14. Pel que fa a l’origen dels virus, la comunitat científica descarta que siguin els primers organismes que van viure al nostre planeta, malgrat que la seva estructura sigui molt senzilla. Per què creus que n’està tan segura?
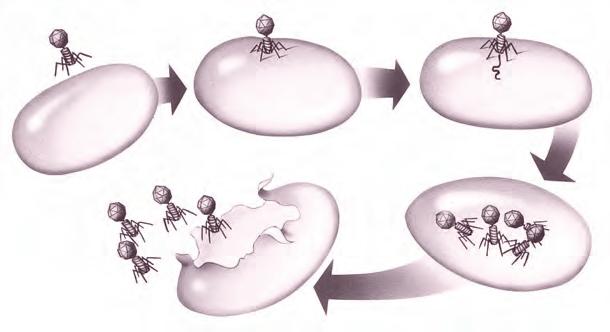
5.15. La il·lustració de l’esquerra correspon a un cicle biològic molt freqüent.
a) De quin procés es tracta?
b) Identifica-hi les cinc fases representades.
c) Explica què succeeix en la tercera fase.
5.16. En la incertesa causada per la manca de solucions contra la infecció pel VIH, es va arribar a dir que aquest virus no era el causant de la sida. Es deia que acompanyava la malaltia sense ser-ne l’autèntica causa. El coneixement científic no es pot basar en suposicions, sinó que es fonamenta en fets d’observació. Com demostraries que el VIH és el causant de la sida?
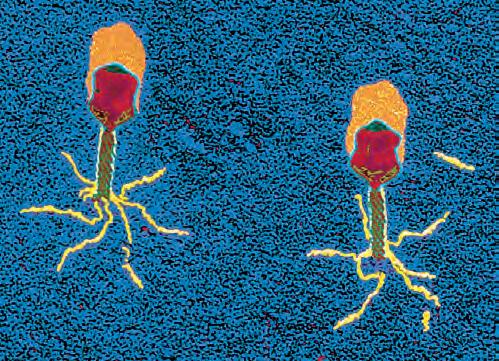
5.17. Observa les fotografies de dalt, en què es veuen bacteris estreptococs (a l’esquerra) i virus bacteriòfags (a la dreta), i explica què són les estructures assenyalades.
Vivim envoltats per microbis, especialment bacteris, una petita quantitat dels quals tenen capacitat per produir-nos infeccions quan es donen determinades circumstàncies.
Segons alguns càlculs, el nombre de bacteris presents en el cos humà és de 1014, la qual cosa significa que transporten més bacteris que cèl·lules pròpies.
Els microbis es troben a la pell, al tub digestiu, a les vies respiratòries i a les vies urinàries, és a dir, a la superfície del cos humà. Quan un d’aquests microorganismes penetra al medi intern, on es reprodueix, dissemina i causa alteracions a les cèl·lules, els teixits i els òrgans interns, parlem d’infecció. El conjunt de símptomes que produeix una infecció és una malaltia infecciosa. El causant de la infecció s’anomena agent infecciós o patogen i l’organisme afectat, hoste.
Quan parlem de malalties infeccioses fem servir sovint com a sinònims termes com microbi, microorganisme, germen, agent infecciós i patogen. Amb aquestes denominacions es designen organismes cel·lulars molt diferents entre ells, com els bacteris, alguns protoctists i alguns fongs, però també els virus que no tenen estructura cel·lular i que no s’inclouen en cap dels regnes en què es divideix la biosfera, i també els prions, variants de proteïnes amb capacitat infectiva.
La microbiologia és la ciència que estudia la forma, l’estructura i les funcions dels microbis, i té un paper destacat en diversos camps, com per exemple la medicina, la producció i conservació d’aliments, la producció de medicaments i vacunes, l’agricultura, la biotecnologia i els processos de regeneració del medi ambient.
Les malalties infeccioses han estat la principal causa de mort de l’ésser humà al llarg dels segles. Les epidèmies de pesta, còlera, verola, etc. han tingut un paper rellevant en la història de la humanitat i han condicionat la demografia en moltes zones del planeta.
Des de mitjan segle XIX, la lluita contra les infeccions ha donat resultats importants gràcies a les aportacions de nombrosos científics i metges, com ara Louis Pasteur, Robert Koch i Alexander Fleming. Alguns exemples són l’aïllament de nombrosos agents infecciosos, el desenvolupament de les vacunes, l’obtenció de nous medicaments com els antibiòtics i les millores en les mesures d’asèpsia i antisèpsia en els hospitals.
Paral·lelament als avenços científics, les condicions sanitàries a les ciutats i la higiene personal van millorar, la qual cosa va fer que els més optimistes anunciessin la fi de les malalties infeccioses com a
Els virus, juntament amb els bacteris, són els agents patògens de la major part de les malalties infeccioses. La lluita contra les malalties víriques és complexa, ja que els medicaments antiinfecciosos més eficaços, com els antibiòtics, no fan cap efecte contra els virus. Com que els virus són paràsits cel·lulars obligats, la seva destrucció implica també la destrucció de les cèl·lules hoste.
Els tractaments antivírics actuen obstaculitzant la penetració dels virus a les cèl·lules i impedint que, si han aconseguit entrar-hi, s’hi puguin multiplicar.
Dades sobre les malalties infeccioses
– Morts anuals: 13 milions de persones, de les quals:
– 3,5 milions per infeccions respiratòries
– 2,5 milions per infecció amb VIH
– 2,5 milions per diarrees
– Les morts per malalties infeccioses representen el 25% del total de morts anuals.
– En els països en vies de desenvolupament aquest percentatge arriba al 43%.
– És la segona causa de mort després de les malalties cardiovasculars.
problema sanitari greu. La realitat, però, no ha confirmat aquell optimisme.
Avui dia la incidència de les malalties infeccioses està associada al desenvolupament econòmic. Al països desenvolupats les malalties infeccioses han deixat de ser la principal causa de mort i en general hi ha una gran capacitat de resposta davant les noves infeccions. Als països més pobres, però, les infeccions encara són el principal problema sanitari i la primera causa de mort entre la població. La majoria d’aquests països no disposen de recursos per aplicar les mesures preventives (els programes de vacunació) ni les curatives (ús de medicaments). Fins i tot algunes d’aquestes malalties, que estaven en regressió, han rebrotat, com per exemple la sífilis i la tuberculosi. D’altres, com les provocades pels anomenats virus nous, com el d’Ebola, el de Lassa, el de Marburg, el VIH o virus de la sida, el de la grip aviària i el SARS, han fet estralls en algunes de les zones més pobres del planeta.
Així doncs, les infeccions tornen a ser motiu de gran preocupació per les autoritats polítiques i sanitàries, i també per la població en general. Entre les diverses causes podem esmentar les següents:
– En alguns països hi ha hagut un relaxament en l’aplicació de les mesures preventives contra aquestes malalties.
– Molts països no disposen dels recursos econòmics necessaris per aplicar els programes sanitaris adequats, com ara les vacunacions massives o la utilització de medicaments eficaços, sovint controlats per les multinacionals farmacèutiques.
– Alguns agents infecciosos, principalment bacteris, s’han fet resistents a certs tractaments que fins fa poc eren eficaços; d’altres, com el virus de la grip aviària, han originat, per mutació, soques infectives per als éssers humans.
– L’ús inadequat de certs medicaments, especialment els antibiòtics, ha fet que perdessin eficàcia en el tractament de les infeccions.
– El fet que la mobilitat de la població sigui cada cop més habitual i es faci d’una manera més ràpida ha comportat que els agents infecciosos de certes malalties viatgin i es dispersin amb la mateixa facilitat i rapidesa.
– Nombrosos aspectes de la globalització de béns i mercats, com per exemple la creixent urbanització, la desforestació i els canvis en els usos del terra, la utilització massiva de plaguicides i la ramaderia intensiva, amb els seus impactes biològics i els canvis socioeconòmics induïts, han tingut una gran repercussió en la transmissió de les infeccions.
– El rebrotament d’algunes infeccions, com el paludisme i el dengue, en determinades zones geogràfiques s’ha associat a l’escalfament global de la Terra. Alguns paràmetres climàtics, com la temperatura i la humitat, condicionen el cicle vital i la supervivència dels agents infecciosos en el medi extern i intervenen en l’estacionalitat de les infeccions.
Fins al segle XIX no es va descobrir l’autèntica naturalesa de les malalties infeccioses. Va ser el biòleg francès Louis Pasteur (1822-1895) qui va demostrar la naturalesa microbiana de les malalties infeccioses. Un cop fet el descobriment, va ser possible començar a combatre-les amb eficàcia. A diferència d’altres malalties, les infeccioses acostumen a ser contagioses; és a dir, es poden transmetre d’una persona afectada a una altra de sana, a vegades molt fàcilment. Perquè hi hagi infecció cal, doncs, que hi hagi contagi.
Les malalties endèmiques estan limitades a una àrea geogràfica i afecten només les persones que hi viuen; quan s’escampen d’un indret a l’altre i afecten una part important de la població es parla d’epidèmia (o epizoòtia si es tracta d’una malaltia animal).
S’anomena període d’incubació el temps que transcorre des que es produeix el contagi fins que es manifesta la malaltia. Aquest període pot ser de pocs dies, com en el cas de la grip, o fins i tot d’anys, com sovint passa amb la sida. Durant el període d’incubació, i encara que els símptomes no es manifestin, la persona afectada pot contagiar-la (transmetre’n el microbi).
Tipus de malalties infeccioses
Hi ha molts tipus de microbis patògens (causants de malalties). En el cas de la malària o paludisme –la principal malaltia infecciosa a escala mundial, per bé que no afecta el nostre país– l’agent patogen és un protozou (és a dir, un organisme eucariota unicel·lular) que viu a l’interior dels glòbuls vermells de la sang. També és un protozou l’agent causant de la malaltia de la son. Hi ha també malalties infeccioses produïdes per fongs. La candidiasi, el peu d’atleta o altres malalties de la pell (com la tinya) en són exemples. Tanmateix, una gran part de les malalties infeccioses més comunes són produïdes per bacteris o virus. Algunes malalties infeccioses es contagien per mitjà d’un tercer organisme, o organisme vector,que no és el causant de la malaltia, sinó que traspassa o inocula els microbis causants. Això passa, per exemple, amb la malària o paludisme, que és produïda per protozous del gènere Plasmodium que es transmeten per mitjà de la picada de mosquits del gènere Anopheles, que en són els vectors. Quan una femella d’aquests mosquits (els mascles no piquen) pica una persona o animal amb paludisme, xucla, juntament amb la sang, els plasmodis, de manera que quan torna a picar els inocula de nou.
Prevenció i tractament de les malalties infeccioses
La vacunació és una pràctica preventiva que cal aplicar abans que la malaltia s’hagi desenvolupat. Consisteix en la inoculació de parts no infeccioses dels microorganismes, o bé dels microorganismes sencers però alterats per tal que no provoquin la infecció. La vacuna sensibilitza el sistema immunitari de manera que podrà evitar la malaltia si l’individu es veu exposat al microbi infecciós. Les malalties infeccioses es tracten amb l’administració de sèrums (seroteràpia) o de fàrmacs (quimioteràpia), com ara els antibiòtics, que, si bé són eficaços en el cas de les malalties produïdes per bacteris, no ho són per a les d’origen víric.
Femella de mosquit Anopheles, organisme vector de l’agent causal de la malària o paludisme, el protozou Plasmodium falciparum
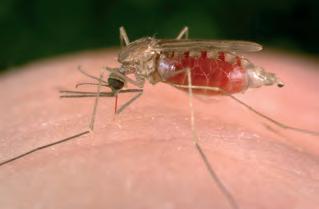
La cadena epidemiològica d’una infecció és la seqüència d’elements i factors que intervenen en el pas d’un agent infecciós des d’una font d’infecció a un hoste susceptible. Els elements i factors que cal conèixer de la cadena epidemiològica d’una infecció són els següents: l’agent causal, els mecanismes de transmissió, l’hoste susceptible i el medi ambient
Elements i factors de la cadena epidemiològica d’una infecció
AGENT CAUSAL TRANSMISSIÓ
Reservori o font de la infecció
Dosi infectiva
Infectivitat
Patogenicitat
Virulència
Immunogenicitat
Directa
Contacte cutani o de mucoses
Inhalació a curta distància: esternut, tos…
Indirecta
Vehicle comú: aliments, aigua, objectes diversos…
Via aèria (inhalatòria a llarga distància)
Vector (animal)
Susceptibilitat – Base genètica – Edat – Sexe
Exposicions
Mecanismes de defensa innata
Immunitat específica – Humoral – Cel·lular
FACTORS
Físics
Biològics
Socials i econòmics
De l’agent causal cal conèixer la font d’infecció, la dosi infectiva i algunes de les seves característiques microbiològiques, com per exemple la transmissibilitat, la infectivitat, la patogenicitat, la virulència i la immunogenicitat.
Agents infecciosos i malalties que provoquen
Agents Malalties
Prions
Molècula proteica patògena i transmissible.
Virus
Sense estructura cel·lular. Paràsits cel·lulars obligats.
No s’inclouen en cap dels regnes en què es divideixen els organismes coneguts.
Bacteris
Els organismes d’organització cel·lular més senzilla, procariotes. S’inclouen en el regne de les moneres.
Fongs
Eucariotes, unicel·lulars o pluricel·lulars i heteròtrofs.
S’inclouen en el regne dels fongs.
Protozous
Eucariotes, unicel·lulars o multicel·lulars, heteròtrofs.
S’inclouen en el regne dels protoctists.
Encefalopaties espongiformes transmissibles (EET): scrapie de cabres i ovelles; encefalopatia espongiforme bovina (EEB) o malaltia de les vaques boges; malaltia de Creutzfeldt-Jakob; insomni familiar fatal; kuru.
Febre groga, galteres, grip, grip aviària, hepatitis, herpes, poliomielitis, refredat comú, ràbia, varicel·la, verola, xarampió, alguns tipus de càncer.
Càries dental, còlera, diftèria, dengue, escarlatina, febre groga, gastroenteritis, gonorrea (o gonocòccia), laringitis, legionel·losi, lepra, pesta, sífilis, tètan, tifus, tos ferina, tuberculosi.
Candidiasi (muguet, vaginitis, balanitis), tinya (peu d’atleta).
Disenteria, malaltia de la son, paludisme o malària.
Algunes malalties humanes provocades per virus
Malaltia Tipus de virus
Ebola ARN d’un filament.
Febre groga
Galteres
Grip
Hepatitis
Varicel·la
Virus embolcallat. ARN d’un filament.
Virus embolcallat. ARN d’un filament.
Virus embolcallat. ARN d’un filament. Se’n coneixen diferents tipus (A, B, C) que muten amb gran facilitat.
Virus no embolcallat. Càpsida icosaèdrica. Se’n coneixen diferents tipus (A, B, C, D, E).
Virus embolcallat. ADN de cadena doble.
Poliomielitis
Virus icosaèdric. ARN d’un filament.
Ràbia o hidrofòbia
Virus embolcallat. ARN d’un filament.
Símptomes i transmissió Observacions
Febres molt altes i hemorràgies internes massives. Es transmet per contacte directe entre persones malaltes.
Febre, inflamació del fetge (que provoca una coloració groga de la pell característica) i nefritis.
Inflamació de les glàndules salivals i, en alguns casos, del pàncrees i els testicles. Es transmet mitjançant partícules de saliva de persones infectades.
Febre, mal de cap, calfreds, dolors musculars, catarro nasal, tos, etc.
Inflamació del fetge i destrucció de les cèl·lules hepàtiques. Mecanismes de transmissió: vies oral, venosa, sexual.
Febre i erupció cutània amb butllofes que poden deixar senyals permanents. Es transmet per les secrecions salivals o per contacte directe amb les butllofes.
Febre lleu que en ocasions es complica, afecta el sistema nerviós i produeix paràlisi. El contagi és per contacte directe i per aliments i aigües contaminades.
Febre alta, cansament, espasmes de la faringe amb dolor durant la deglució, excitabilitat i paràlisi dels centres nerviosos. Es contagia per mossegades d’animals infectats (gossos, rates, gats…).
Mortalitat molt alta.
En el passat va provocar pandèmies a l’Àsia, a Amèrica i a l’Àfrica.
Afecta especialment infants i adolescents.
Cada any se’n produeixen epidèmies i s’elaboren vacunes efectives.
Per a alguns tipus d’hepatitis existeixen vacunes eficaces.
Afecta especialment els infants d’entre 2 i 9 anys.
Va ser una de les primeres malalties víriques que es va combatre amb vacunacions massives de gran efectivitat.
Cal un control sanitari estricte dels possibles animals transmissors. En cas de mossegada sospitosa cal una intensa desinfecció de la ferida i una vacunació específica.
Rubèola o rosa
Virus embolcallat. ARN d’un filament.
Virus amb dues cobertes proteiques. Dues molècules d’ARN d’un filament.
Virus animal més gran. ADN de doble filament.
Sovint asimptomàtica, pot provocar febre i inflamació dels ganglis. Es transmet per les secrecions salivals i respiratòries.
Ataca i destrueix els limfòcits del sistema immunitari i produeix un afebliment de les defenses que afavoreix el desenvolupament d’altres infeccions. Es transmet per la sang o pels fluids sexuals.
Febre intensa, esgarrifances, dolors lumbars, vòmits i formació de vesícules a la pell. En molts casos és mortal. El contagi es produeix per via respiratòria o per contacte amb objectes contaminats.
Malaltia especialment perillosa si afecta una dona embarassada, ja que pot provocar malformacions en el fetus.
Es creu que serà un dels problemes sanitaris més importants del segle XXI S’han desenvolupat fàrmacs que retarden el desenvolupament de la malaltia i s’està experimentant amb vacunes.
En el passat va causar epidèmies molt greus. A partir de 1967 es van començar campanyes massives de vacunació i, l’any 1980, l’OMS va declarar que era una malaltia totalment eradicada.
Virus esfèric embolcallat. ARN d’un filament.
Refredat nasal, febre, conjuntivitis i erupcions a la mucosa bucal i a la pell. Es transmet per via respiratòria.
La vacunació té lloc aproximadament als 12 mesos, per mitjà de la vacuna triple vírica.
Algunes malalties humanes provocades per bacteris
Malaltia Bacteri Patologia
Febre tifoide Salmonella typhi
Còlera
Disenteria bacteriana
Tètan
Gangrena gasosa
Gonocòccia (gonorrea o blennorràgia)
Sífilis
Diftèria
Tuberculosi
Meningitis meningocòccica
Pneumònia
Pesta
Úlcera d’estómac
Vibrio cholerae
Shigella dysenteriae
Clostridium tetani
Bacteris del gènere
Clostridium
Neisseria gonorrhoeae (gonococ)
Treponema pallidum
Corynebacterium diphteriae
Mycobacterium tuberculosis (bacil de Koch)
Neisseria meningitidis (meningococ)
Streptococcus pneumoniae
Pasteurella pestis
Helicobacter pylori
Ulceracions als intestins que posteriorment afecten tot el cos.
Alteracions en la paret intestinal que provoquen grans pèrdues d’aigua i d’electròlits.
Alteracions en els intestins que provoquen diarrea i febre alta.
Secreció de toxines que ataquen la medul·la espinal i provoquen contraccions musculars permanents i el col·lapse de la musculatura.
Producció de gasos en les ferides afectades, amb necrosi dels teixits.
Alteracions en l’aparell genital i l’urinari. Es transmet per contacte sexual.
Lesions que afecten els genitals i, posteriorment, tot el cos. Es transmet per contacte sexual.
Inflamació de les vies respiratòries superiors que pot provocar la mort per asfíxia.
Lesions en els pulmons amb necrosi de les zones afectades.
Inflamació i lesions de les meninges.
Inflamació i lesions dels bronquis.
Febre molt alta, coma i mort. Es transmet mitjançant animals, com ara puces, xinxes, rates, etcètera, o directament d’un ésser humà a un altre.
Ulceracions a l’estómac.
Els mecanismes de transmissió són les vies per mitjà de les quals un agent infecciós passa del reservori o font d’infecció a un hoste susceptible. Hi ha agents que tenen mecanismes de transmissió molt concrets, però el més habitual és que un agent pugui fer servir més d’una via de transmissió. Alguns agents infecciosos es transmeten per contacte directe entre una persona infectada i una persona sana. De vegades, algunes persones poden transmetre l’agent infecciós d’una malaltia sense estar malaltes. Són els portadors sans, que sovint s’han vist afectats per la malaltia d’una forma benigna, no aparent. D’altres es transmeten d’una manera indirecta.
El contacte cutani o entre mucoses és una de les formes més habituals de la transmissió directa. S’inclouen en aquest tipus de transmissió les malalties de transmissió sexual (MTS), com la sífilis i la gonorrea, la infecció pel virus de la immunodeficiència humana (VIH) i la mononucleosi, o malaltia del petó, que es transmet mitjançant la mucosa bucal. Moltes infeccions cutànies, respiratòries i digestives es transmeten pel contacte directe de les mans d’una persona sana amb malalts o pel contacte de les seves secrecions.
Una altra forma de transmissió directa molt freqüent és la inhalació de l’aerosol de gotetes que contenen microorganismes que produeixen persones malaltes quan tussen, esternuden o parlen. Es tracta d’una transmissió per l’aire a curta distància, de l’ordre d’un metre. El refredat comú, la grip, la rubèola, el xarampió i la meningitis són algunes de les moltes infeccions que es poden transmetre per aquesta via.
La via placentària de mare a fetus, que té una gran incidència en l’actual pandèmia de la sida, és una altra forma de transmissió directa. La rubèola també es pot transmetre per aquesta via.
En la transmissió indirecta cal que un vehicle comú o un vector (animal)transporti l’agent infecciós des de la font d’infecció fins a l’hoste susceptible. Els vehicles comuns transmissors d’infeccions poden ser ben diversos. Per exemple, l’aigua contaminada és el vehicle transmissor de nombroses malalties diarreiques, com ara el còlera i el tifus; els aliments amb una conservació deficient, o amb manca de higiene en la seva manipulació, són vehicles molt freqüents en la transmissió d’algunes malalties, com ara la salmonel·losi i l’hepatitis; alguns objectes comuns, que prèviament han estat en contacte amb persones malaltes, com per exemple roba, tovalloles, joguines, diners, estris de cuina o instrumental divers, són el vehicle transmissor de diverses infeccions.
Algunes infeccions respiratòries es transmeten per via aèria o inhalatòria, tot i que en aquest cas la distància requerida és molt superior a la de les malalties de les mateixes característiques que es transmeten per contacte directe. Per exemple, la legionel·losi (malaltia del legionari o febre de Pontiac)és una infecció emergent, desconeguda fins l’any 1977, causada per bacteris del gènere Legionella que es transmet en aspirar aire contaminat procedent de torres de refrigeració dels sistemes d’aire condicionat d’edificis contaminades per aquest bacteri.
Una altra forma de transmissió indirecta és l’anomenat vector infecciós, que defineix l’animal que adquireix un agent patogen d’una persona i el transmet a una altra persona que no estava afectada. Per exemple, els insectes hematòfags del grup dels culícids, com ara el mosquit Stegomyia (abans Aedes), que és el vector de la febre groga i el dengue, i el mosquit Anopheles, les femelles del qual són vectors de la malària o paludisme.
L’individu que presenta una propensió més gran a adquirir una malaltia infecciosa s’anomena hoste susceptible. Els estudis epidemiològics de les malalties infeccioses posen de manifest que en una mateixa població i en condicions similars, davant d’una possible infecció, la resposta de les persones és força diferent. En els estudis fets sobre la transmissió del VIH s’ha comprovat que persones exposades reiteradament al virus no desenvolupen la malaltia malgrat que presenten una important càrrega viral.
La susceptibilitat de l’hoste depèn de nombrosos factors, com per exemple la base genètica, l’edat, el sexe, la professió, els hàbits de vida, les condicions socioeconòmiques, la mobilitat (viatges), etc.
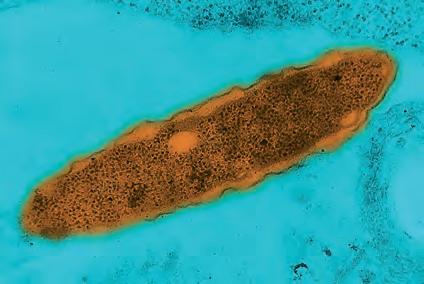
Bacteri Legionella pneumophila vist a través del microscopi electrònic de transmissió.
Cada hivern, amb l’arribada del fred, augmenten de forma sobtada els casos de grip. Alguns anys es desenvolupen veritables epidèmies que poden afectar un percentatge important de la població. La major pandèmia de grip descrita es va produir entre els anys 1918 i 1919, a l’hivern, va ser anomenada grip espanyola i va provocar la mort de 20 milions de persones. Altres epidèmies de grip de trist record van ser la de l’any 1957, coneguda com a grip asiàtica, la de l’any 1968, o grip de Hong Kong, i la de l’any 1997, anomenada grip russa.
Cada any, la localització, l’extensió i la incidència de les epidèmies de grip és força diferent. Es coneixen tres tipus de virus de la grip, anomenats amb les lletres A, B i C, el menys virulent dels quals és el C.
La grip es transmet pels virus continguts en les gotetes que els malalts exhalen quan tussen o parlen. El període d’incubació va de les 18 a les 72 hores, i la malaltia es manifesta amb febre, catarro nasal, tos i malestar general (mal de cap, dolor muscular, abatiment…). La grip es tracta amb repòs, ingestió abundant de líquids i medicaments antipirètics per fer baixar la febre. Com en totes les malalties d’origen víric, els antibiòtics no són eficaços i la seva administració només és justificada si es produeixen sobreinfeccions bacterianes. Les principals complicacions bacterianes que poden acompanyar la grip són l’otitis, la sinusitis i la pneumònia, especialment en les persones d’edat avançada.
Cada any, a la tardor, davant de la possible epidèmia de grip, les autoritats sanitàries prenen les mesures següents:
– Detectar el tipus i la variant de virus responsable de l’epidèmia.
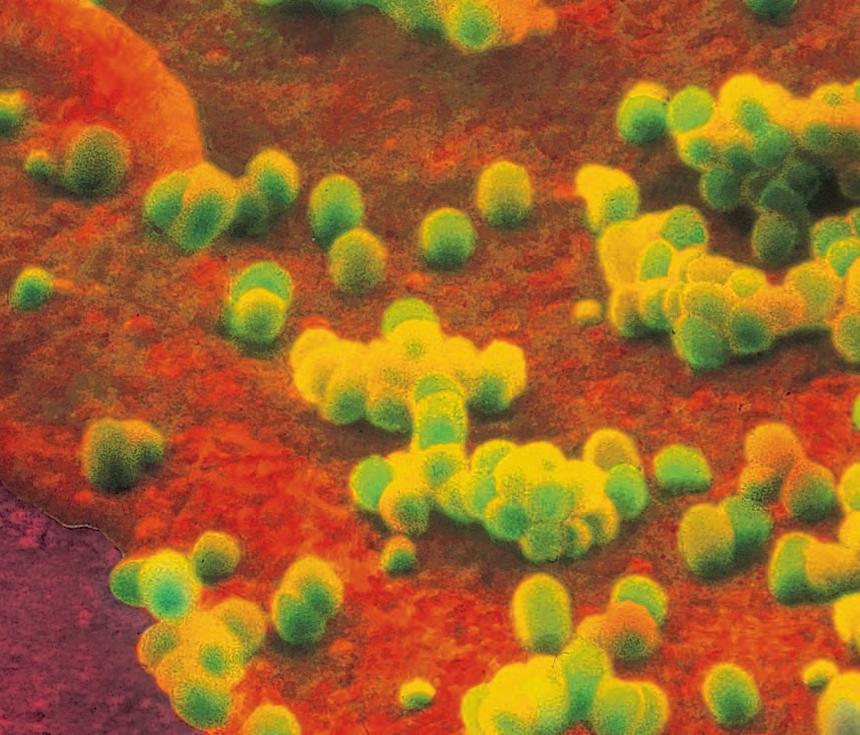
– Obtenir la vacuna específica contra el virus detectat. Normalment es fan servir fragments del virus debilitat que, una vegada inoculats, estimulen en les persones vacunades la formació d’anticossos i de limfòcits T, els quals reconeixen i eliminen les cèl·lules infectades pel virus.
– Portar a terme una campanya de vacunació durant els mesos d’octubre i novembre. En aquest període és convenient que les persones en situació de risc es vacunin. Aquestes persones són les més grans de 65 anys; les que tenen malalties cròniques de l’aparell cardiovascular o respiratori; les que tenen problemes immunològics o malalties metabòliques greus, i les que estan en contacte amb malalts o que pertanyen a grups l’afectació dels quals pugui posar en perill la prestació de serveis bàsics.
En relació amb la base genètica, cada cop es coneixen més gens específics implicats en les malalties infeccioses, tot i que en la majoria de les malalties la susceptibilitat és essencialment poligènica.
Pel que fa a l’edat, la susceptibilitat a les infeccions és més gran en els lactants, els infants i les persones grans que en les persones joves i adultes. En els lactants i els infants això és degut al fet que sovint estan exposats a nous ambients (llars d’infants, escoles…) on entren en contacte amb agents infecciosos. En el cas de les persones grans, la major susceptibilitat és deguda al deteriorament de la funció immunitària.
La presència i proliferació de microorganismes en la pell o en una cavitat interna d’un hoste humà o animal, sense invasió de teixits interns ni danys, s’anomena colonització. Quan aquests microorganismes envaeixen els teixits interns i s’hi reprodueixen, fet que causa símptomes i danys locals, es parla d’infecció. El conjunt de manifestacions clíniques (febre, inflamació local, tos, decaïment, etc.) produït per una infecció s’anomena malaltia infecciosa o transmissible. Parlem de malaltia contagiosa quan presenta un risc molt alt de transmissió de persona a persona.
El període d’incubació és el temps que transcorre entre l’inici de l’exposició a un agent infecciós (adquisició de la infecció) i l’aparició dels primers símptomes. En aquest període es produeix la multiplicació de l’agent i, malgrat no presentar símptomes, l’hoste incubacionari pot transmetre la malaltia.
La durada del període d’incubació varia segons cada malaltia i en cap cas es tracta d’un valor fix. La dosi infectiva, la porta d’entrada de la infecció i la rapidesa i la intensitat de la resposta immunitària són alguns dels factors que en determinen la durada. Per exemple, en les toxicoinfeccions alimentàries el període d’incubació és molt curt, de poques hores; en la grip, d’1 a 3 dies; en el refredat comú, de 2 a 3 dies; en el xarampió, de 8 a 14 dies; en la hepatitis B, de 30 a 80 dies, i en la infecció per VIH, de 5 a 10 anys.
Al període d’incubació el segueix la fase de lesmanifestacions clíniques. Una vegada l’agent infecciós ha superat les primeres barreres del sistema immunitari, es multiplica ràpidament i envaeix diversos teixits i òrgans. Les manifestacions clíniques són pròpies de cada infecció, però les més freqüents són inflamació, febre, tos, diarrea, vòmits, decaïment i mal de cap. Si l’acció del
La varicel·la és una malaltia infecciosa que es caracteritza, després del període d’incubació, per l’aparició de febre i erupcions a la pell, amb vesícules que produeixen coïssor, s’assequen i formen crostes.
El bacteriòleg escocès Alexander Fleming (1881-1955) fou el descobridor de les propietats antibiòtiques de la penicil·lina.
sistema immunitari de l’hoste i dels tractaments administrats és suficient, la persona malalta entra en la fase deconvalescència. Durant aquest període l’organisme de la persona afectada torna a la situació inicial i es recupera de les alteracions i les lesions provocades per la infecció.
Parlem de resoluciód’una infecció quan l’hoste afectat s’ha curat o bé s’ha mort. Una altra situació que es pot donar és que l’hoste infectat, tot i que hagi seguit els tractaments prescrits i li hagin desaparegut els símptomes de la malaltia, mantingui una determinada càrrega infectiva. Això és el que els passa a moltes persones infectades pel virus VIH, les quals, tot i seguir tractaments amb antiretrovirals i no desenvolupar símptomes, mantenen una càrrega viral mínima.
Alguns hostes que han patit una determinada malaltia infecciosa poden quedar immunitzats, temporalment o definitivament, perquè el seu sistema immunitari desenvolupa una memòria immunològica. També es pot donar el cas que hostes que han patit una infecció que ha passat desapercebuda poden ser-ne transmissors: són els anomenats portadors sans.
Els antibiòtics són substàncies químiques, naturals o sintètiques, que tenen la capacitat de destruir o impedir la reproducció de nombrosos agents infecciosos, especialment bacteris. La producció i utilització a gran escala dels antibiòtics va començar a la dècada de 1940 i va suposar un progrés extraordinari en el tractament de nombroses malalties infeccioses.
L’antibiosi és la capacitat que tenen algunes substàncies, originades per organismes vius, per destruir altres organismes. L’aplicació del concepte d’antibiosi és tan antiga com la mateixa medicina. Fa 2500 anys els xinesos ja coneixien la capacitat curativa de la pela de soja amb floridures aplicada als furóncols i d’altres infeccions semblants. Així mateix, hi ha descripcions mèdiques molt antigues que fan referència als efectes beneficiosos de l’aplicació de terra i vegetals, probablement font de fongs i bacteris que produeixen antibiòtics, a les infeccions.
Els antibiòtics inhibeixen el creixement bacterià ja que bloquegen els processos bioquímics que sintetitzen components necessaris per formar nous bacteris. D’aquesta manera faciliten que el sistema immunitari els pugui destruir. Per exemple, la tetraciclina s’uneix als ribosomes bacterians i impedeix la síntesi de proteïnes, i la penicil·lina bloqueja la síntesi de components necessaris per fabricar la membrana cel·lular bacteriana.
L’any 1928 el bacteriòleg escocès Alexander Fleming va descobrir, de manera casual, que una substància segregada pel fong Penicillium notatum aturava la multiplicació dels bacteris responsables d’algunes infeccions de l’aparell respiratori. Aquesta substància, que va anomenar penicil·lina, és considerada el primer antibiòtic.
Algunes coses que cal saber dels antibiòtics
– Els antibiòtics són medicaments eficaços en el tractament de les malalties infeccioses causades per bacteris i fongs. Alguns actuen en la membrana del bacteri i d’altres penetren a l’interior de la cèl·lula i en bloquegen o destrueixen funcions fonamentals.
– No es fan servir en les infeccions víriques, per exemple en el cas de la grip, perquè són paràsits intracel·lulars obligats; la destrucció d’un virus implica també la destrucció de la cèl·lula hoste.
– Originàriament es van obtenir a partir de microorganismes, principalment de fongs. Avui dia molts s’obtenen sintèticament.
– Alguns antibiòtics són efectius contra bacteris concrets (antibiòtics específics). D’altres són eficaços contra un grup d’infeccions (antibiòtics d’ampli espectre).
– L’eficàcia d’un antibiòtic en el tractament d’una malaltia infecciosa depèn de la dosi total que cal administrar, que és la que prescriu el metge, i del fet de respectar l’interval de temps entre les dosis parcials i la durada total del tractament.
– L’administració d’antibiòtics pot tenir efectes adversos. Així doncs, poden afectar i destruir bacteris benignes, la presència dels quals limita sovint l’acció dels bacteris patògens, interferir en l’acció d’altres medicaments o estar contraindicats en algunes circumstàncies, com per exemple en les dones embarassades o en persones afectades per insuficiència renal o hepàtica.
– Alguns antibiòtics tenen aplicacions en la ramaderia i l’agricultura per combatre plagues de fongs i altres paràsits. No obstant, les autoritats sanitàries han de controlar de manera estricta aquestes aplicacions per evitar que puguin afectar els éssers humans.
– Un problema mèdic important relacionat amb l’ús dels antibiòtics que s’ha detectat en les darreres dècades és la resistència que mostren alguns bacteris als tractaments que fins fa poc eren efectius. S’ha comprovat que els bacteris resistents als antibiòtics contenen gens específics capaços de dirigir la síntesi d’enzims que expulsen l’antibiòtic de la cèl·lula bacteriana, el degraden o l’inhibeixen.
Alguns antibiòtics utilitzats en l’actualitat
Antibiòtic Procedència Actuació Malaltia
Penicil·lina
Fong
Cefalosporina Fong
Antibacterià Bronquitis, pneumònia, faringitis, sífilis
Antibacterià
Tetraciclina Bacteris Antibacterià
Estreptomicina Bacteris Antibacterià
Cloramfenicol Bacteris
Antibacterià
Antifúngic Bacteris Antifúngic
Eritromicina Bacteris Antibacterià
Infeccions urinàries, gastroenteritis
Ampli espectre per a febres i diarrees
Tuberculosi, infeccions intestinals
Tifus
Candidiasi
Substitueix la penicil·lina en les persones al·lèrgiques
Fong Candida albicans vist a través del microscopi electrònic de transmissió. Les cèl·lules més arrodonides són espores.
Les micosis són les malalties infeccioses en les quals els agents infecciosos són fongs, és a dir, organismes eucariotes, unicel·lulars (llevats) o pluricel·lulars i heteròtrofs. La majoria són sapròfits (s’alimenten de matèria orgànica en descomposició) o paràsits, especialment dels vegetals. En alguns casos proliferen excessivament a la pell i a les cavitats dels animals i dels éssers humans i originen infeccions.
De les nombroses micosis conegudes cal destacar dos grups: les tinyes i les candidiasis.
Les tinyes o dermatofitosis són les infeccions causades per fongs del grup dels dermatòfits que afecten la pell, les ungles i els pèls. Aquests fongs no envaeixen els òrgans interns. Una de les més freqüents és la tinya dels peus o peu d’atleta, que s’inicia als espais entre els dits dels peus amb l’aparició de clivelles i petites vesícules que fàcilment s’estenen per tota la planta del peu. Aquesta infecció produeix una forta coïssor i és molt contagiosa. Un lloc de contagi freqüent són les dutxes de piscines i gimnasos, per la qual cosa és recomanable fer servir sabatilles de bany per evitar el contacte directe amb les zones que puguin estar contaminades pels fongs.
Les candidiasis són micosis que afecten la pell o les mucoses digestiva, genital i urinària provocades per fongs del gènere Candida. El muguet o candidiasi oral, consistent en la formació de pàpules primer i plaques després, de color blanc i consistència cremosa, és freqüent en els infants.
Les candidiasis genitals són força freqüents i afecten la vagina i els genitals externs, en el cas de les dones, i el gland i el prepuci, en el cas dels homes. Aquestes micosis es transmeten amb facilitat a través de les relacions sexuals.
Existeixen medicaments força eficaços per combatre les micosis, però els tractaments són llargs i cal mantenir-los sense interrupcions el temps necessari, malgrat que aparentment els símptomes de la malaltia hagin desaparegut.
Vocabulari sobre les infeccions
Asèpsia. Absència de microorganismes patògens. La tècnica asèptica és un mètode preventiu que, mitjançant l’esterilització, pretén evitar la presència de gèrmens en les instal·lacions sanitàries, especialment els quiròfans, l’instrumental sanitari, la roba i el cos del personal sanitari.
Antisèpsia. Tècnica de prevenció de les infeccions, especialment les que es poden originar per ferides, mitjançant la destrucció o inhibició dels microorganismes que les produeixen. Els antisèptics són les substàncies químiques que impedeixen la proliferació i l’acció dels agents patògens. L’alcohol, l’àcid bòric, l’aigua oxigenada i el iode són alguns dels antisèptics més utilitzats.
Bactericida. Substància que destrueix els bacteris i n’impedeix la proliferació. Els antibiòtics, com per exemple les penicil·lines, les sulfamides i les tetraciclines, són excel·lents bactericides.
Bacterièmia. Detecció d’un bacteri a la sang mitjançant una analítica. Dosi infectiva. Nombre mínim de microorganismes necessaris per produir una infecció.
Endèmia. Infecció que incideix d’una manera permanent i elevada entre la població d’una determinada àrea geogràfica. El paludisme o malària, per exemple, és una infecció endèmica en moltes zones de la selva tropical.
Epidèmia. Malaltia infecciosa que afecta transitòriament un gran nombre de persones. Les epidèmies de curta durada i que no afecten un nombre de persones considerable s’anomenen brots epidèmics. Les pandèmies són les epidèmies que afecten grans àrees geogràfiques. Algunes de les epidèmies més rellevants històricament són la de la pesta negra que va afectar Europa el segle XIV i la de la grip espanyola que va tenir lloc entre el 1918 i el 1919. La sida és una pandèmia actual.
Epidemiologia. Branca de la medicina que estudia la distribució i els determinants de les malalties. En el cas de les malalties infeccioses, estudia la morbiditat, la mortalitat que comporten, els grups humans afectats, la distribució geogràfica, etc. Els resultats d’aquests estudis permeten dissenyar estratègies per controlar, eliminar i eradicar aquestes malalties.
Font de la infecció. Hàbitat ocasional o accidental en què un agent infecciós manté temporalment la capacitat de reproduir-se i des d’on es pot transmetre a un hoste. En la legionel·losi, per exemple, una font d’infecció freqüent són les torres de refrigeració amb una salubritat i un manteniment defectuosos. En el cas de la salmonel·losi, la font de la infecció pot ser un ou contaminat de Salmonel·la enteritidis. Una xeringa amb sang contaminada amb el virus de l’hepatitis B pot ser la font d’aquesta malaltia.
Fungicida. Substància tòxica que es fa servir per destruir o impedir el creixement dels fongs. La majoria de fungicides es fan servir en agricultura, però també tenen importants aplicacions en l’àmbit de la veterinària i la medicina per combatre les infeccions fúngiques dels animals i els éssers humans.
Immunogenicitat. Capacitat d’un agent infecciós d’induir immunitat específica i duradora. Es mesura per la proporció de persones infectades que adquireixen resistència (fan seroconversió i memòria immunològica).
Químic francès (1822-1895). Algunes de les seves principals aportacions van ser les següents:
– Va dur a terme els experiments definitius per rebatre la idea de la generació espontània dels microorganismes.
– Va estudiar les fermentacions alcohòlica i làctica i va demostrar que eren provocades per fongs del grup dels llevats.
– Va desenvolupar un nou sistema, anomenat pasteurització, per conservar la llet i altres aliments.
– Va establir experimentalment la relació entre els microbis i les malalties infeccioses.
– Va establir els principis per a l’aplicació de les mesures d’asèpsia i antisèpsia en quiròfans, hospitals, etc.
– Va estudiar diverses malalties infeccioses i en va aïllar els agents. Un cas emblemàtic va ser el de la ràbia, malaltia incurable i mortal fins aleshores, per a la qual va obtenir la primera vacuna.
El 1887 va impulsar a París la creació de l’Institut Pasteur, fundació destinada a la recerca per a la prevenció i el tractament de malalties, especialment les infeccioses, i a la millora de la salut pública. Actualment és una de les institucions de recerca més importants del món, amb nombrosos centres dedicats a la recerca biomèdica, la química orgànica i la genètica molecular. L’any 1983, dins el marc de l’Institut Pasteur, l’equip del científic Luc Montagnier va descobrir i aïllar el virus de la immunodeficiència humana (VIH).
Metge alemany (1843-1910), és considerat un dels principals impulsors de la microbiologia mèdica a finals del segle XIX i principis del segle XX. Els descobriments de Koch van ser nombrosos:
– Va desenvolupar un mètode per cultivar bacteris en medis sòlids, com gelatina i agar-agar.
– L’any 1876 va demostrar que un bacteri allargat, un bacil, anomenat Bacillus anthracis, identificat feia uns anys, era el causant de l’àntrax.
– Va descriure les fases que s’han de seguir per establir que un microorganisme és el causant d’una infecció determinada: 1. En tota malaltia infecciosa cal identificar el microbi específic que l’origina. 2. El microbi específic s’ha d’obtenir mitjançant cultius purs. 3. Els microbis obtinguts en aquests cultius cal que provoquin la malaltia en diferents animals d’experimentació. 4. Cal recuperar els microbis específics dels animals d’experimentació.
– L’any 1882 va demostrar que un bacteri allargat, del tipus bacil, anomenat Mycobacterium tuberculosis, era l’agent infecciós responsable de la tuberculosi, una de les malalties més greus i mortals d’aquella època. En honor seu el bacteri es va anomenar bacil de Koch
– El 1883 va descobrir que l’agent causal del còlera era un bacteri anomenat Vibrio cholerae.
– L’any 1905 va rebre el Premi Nobel de Fisiologia o Medicina.
Infecció. Entrada, establiment i reproducció d’un agent infecciós o patogen en la superfície o l’interior d’un altre organisme (hoste), el qual es veu perjudicat en el seu funcionament normal i pot veure amenaçada la seva supervivència.
Infecció dels viatges. Malaltia infecciosa que afecta especialment persones que s’han desplaçat a zones on aquesta malaltia és endèmica. Per prevenir aquestes infeccions cal que les persones que han de viatjar cap a zones on hi ha malalties endèmiques s’informin de la situació i prenguin les mesures higièniques i sanitàries fixades per les autoritats sanitàries (vacunació, administració de medicaments, etc.).
Infecció hospitalària o nosocomial. Infecció que s’adquireix durant l’estada en un hospital i que no era present ni en període d’incubació en la persona malalta quan hi va ingressar. Els símptomes i el desenvolupament de la infecció es poden donar durant l’estada a l’hospital o un cop el pacient ha estat donat d’alta. Les infeccions hospitalàries són un problema greu per als sistemes sanitaris de tot el món per diverses causes: increment dels tractaments invasius, freqüència més gran de les deficiències immunitàries dels malalts, deteriorament en les condicions hospitalàries, aparició de nous microorganismes infecciosos, resistència d’alguns microorganismes als tractaments amb antibiòtics, etc. Per evitar aquestes infeccions cal extremar la vigilància en els serveis de cirurgia, cures intensives i reanimació i hematologia dels centres hospitalaris.
Infecció oportunista. Infecció que es desenvolupa quan els sistema immunitari d’una persona està debilitat a causa d’una altra malaltia o d’un tractament mèdic. Moltes persones afectades pel VIH pateixen infeccions oportunistes greus que sovint són la causa real de la seva mort.
Infectivitat. Capacitat d’un agent infecciós de penetrar i multiplicar-se en els teixits d’un hoste.
Micosi. Malaltia infecciosa provocada per fongs. Entre les més conegudes cal destacar les candidiasis i les tinyes.
MTS. Malaltia infecciosa de transmissió sexual.
Patogenicitat. Capacitat d’un agent infecciós de produir una malaltia. Es quantifica com la proporció de persones infectades que manifesten els símptomes clínics aparents.
Portador sa. Persona que actua com a reservori de l’agent infecciós d’una malaltia i que contribueix a la seva difusió, malgrat que no l’ha tingut o l’ha patit d’una manera tan lleu que ha passat desapercebuda. Una persona pot esdevenir portadora sana quan l’agent infecciós que ha penetrat en el seu organisme no ha tingut el grau suficient de reproducció per provocar la malaltia. Aquest és el cas de persones que són portadores d’alguns virus, com ara el VIH o el de l’hepatitis B. Els portadors sans contribueixen a la difusió d’algunes infeccions.
Prió. Proteïna patògena i transmissible que produeix malalties en el sistema nerviós central del bestiar i dels éssers humans conegudes amb el nom d’encefalopaties espongiformes transmissibles(EET). Profilaxi. Conjunt d’accions i de mitjans que preserven els individus i les poblacions de les infeccions. La vacunació i la higiene de les ciutats són mesures profilàctiques.
Reservori. Hàbitat o hoste natural en què un agent infecciós troba les condicions adequades per a la seva supervivència i des d’on passa a l’hoste susceptible mitjançant els mecanismes de transmissió. Els reservoris poden ser humans, animals o ambientals.
Sèpsia i xoc sèptic. Proliferació massiva de bacteris o fongs a la sang que pot provocar un xoc sèptic o síndrome de resposta inflamatòria sistèmica (SRIS). Es caracteritza per un descens de la tensió arterial, una insuficient circulació perifèrica amb formació de coàguls i una fallada de la majoria dels sistemes orgànics, en especial, el respiratori i el renal.
Teràpia. Conjunt d’accions mèdiques destinades a limitar els efectes d’una infecció i a destruir l’agent infecciós. L’ús de medicaments, sobretot antibiòtics, és una important mesura terapèutica contra les infeccions causades per bacteris.
Toxina. Substància que elaboren alguns agents infecciosos, especialment certs bacteris, que alteren el metabolisme de l’organisme infectat. Aquesta capacitat s’anomena toxicitat. El bacteri Clostridium tetani, agent infecciós del tètan, segrega una toxina que interfereix en la transmissió dels impulsos entre algunes neurones i les fibres musculars i provoca contractures i paràlisi.
Transmissibilitat. Capacitat de disseminació o d’extensió d’una malaltia infecciosa.
Vector. Organisme que transporta i transmet l’agent infecciós d’una determinada malaltia infecciosa. En el cas de la malària o paludisme, per exemple, l’agent infecciós és un protozou del gènere Plasmodium que transmet la femella del mosquit Anopheles. Quan una d’aquestes femelles pica una persona o animal amb paludisme, juntament amb la sang xucla els plasmodis, de manera que quan torna a picar els inocula de nou.
Virulència. Capacitat dels agents infecciosos d’originar, després d’infectar un hoste, una malaltia infecciosa amb danys greus. La taxa de letalitat és la proporció de casos mortals d’una malaltia determinada en relació amb el nombre total de persones infectades.
Glòbuls vermells infectats pel protozou Plasmodium falciparum, causant de la malària o paludisme. El paràsit és l’estructura allargada i groguenca que apareix sota la membrana del glòbul vermell, tots dos en fals color.
Bacils de Koch, l’agent causal de la tuberculosi, capturats per un glòbul blanc en una fotografia, en fals color, de microscòpia electrònica de rastreig.
5.18. Explica les diferències entre colonització i infecció i entre malaltia transmissible i malaltia contagiosa.
5.19. Quina creus que és la principal diferència entre una malaltia infecciosa i una malaltia metabòlica crònica com la diabetis o la hipertensió arterial?
5.20. Explica les diferències entre epidèmia, brot epidèmic i pandèmia
5.21. Els residus hospitalaris no es poden abocar conjuntament amb la resta de la brossa, ja que han de seguir un procés de tractament i reciclatge diferent. Abans de fer-ho, però, s’han de prendre algunes mesures de seguretat per evitar infeccions. Suposem que en un hospital els residus produïts als quiròfans i habitacions presenten, entre altres, bacils de Koch, bacteris del tipus Clostridiumsp i les seves espores, virus de la grip, VIH, restes d’una autòpsia d’un malalt amb la síndrome de Creutzfeldt-Jakob i ous de tènia.
Raona quins tipus de mesures higièniques i d’esterilització caldran per eliminar els agents infecciosos. Pots considerar d’escalfar els residus a 60ºC, bullir-los durant 20 minuts a 100ºC, usar l’autoclau 20 minuts a 121ºC i 2,1 atm, a més d’altres mesures que se t’acudeixin.
5.22. Copia aquest quadre i completa’l.
Malaltia Agent infecciósVia de transmissióÒrgan afectat
Grip
Sífilis
Meningitis
Tifus
Tètan
Tuberculosi
Còlera
5.23. Defineix hoste susceptible d’una infecció i explica quins factors condicionen la susceptibilitat.
5.24. Explica les diferències entre un individu immune a una infecció i un portador sa.
5.25. A quin grup d’agents infecciosos pertanyen els microorganismes del gènere Candida? Quins tipus d’infeccions provoquen? A quins òrgans afecten aquestes infeccions?
5.26. Esmenta tres microorganismes relacionats amb les infeccions hospitalàries o nosocomials.
5.27. Dues de les vies de transmissió indirecta d’algunes infeccions s’anomenen vehicle comú i vector. Defineix aquests dos termes i enumera tres malalties que es transmetin d’aquesta manera.
5.28. Relaciona cada paraula del primer grup amb el mot o sintagma del segon grup que li correspon.
Primer grup: asèpsia, fungicida, ràbia, hepatitis, estreptomicina, prevenció, tinya, bacil, teràpia, virus.
Segon grup: tractament, infecció i inflamació del fetge, sense estructura cel·lular, medicament contra les micosis, bacteri, absència de microorganismes patògens, hidrofòbia, antibiòtic, profilaxi, micosi.
5.29. Una noia ha caigut en una granja, a prop de la zona on hi ha les vaques, i s’ha fet una ferida força profunda en colpejar-se amb una fusta vella. A la mateixa granja li han rentat i desinfectat la ferida i la hi han tapat amb una gasa. Al cap de 48 hores, però, ha començat a tenir febre, dificultats per engolir líquids i aliments, mal de cap, rigidesa dels músculs del coll… En comprovar que els símptomes eren cada cop més evidents, l’han portat a l’hospital, on, després d’una exploració completa, li han prescrit una analítica de sang amb una bacterièmia per detectar la possible presència d’un bacteri a la sang. L’analítica, efectivament, ha determinat la presència del bacteri Clostridium tetani a la sang.
Respon a les preguntes següents:
a) Quina creus que és la infecció que afecta la noia?
b) Com actua aquest bacteri a l’interior del cos de la noia?
c) Quin és el període d’incubació normal d’aquesta malaltia?
d) Es tracta d’una malaltia contagiosa?
e) Com es pot prevenir i tractar aquesta infecció?
5.30. Per facilitar el control epidemiològic de les malalties infeccioses, algunes s’inclouen en el grup de malalties de declaració obligatòria. Busca informació sobre aquest tema a Internet o a la biblioteca del teu centre i enumera cinc d’aquestes malalties.
5.31. Imagina que te’n vas de viatge a l’Àfrica central. Esbrina quines mesures sanitàries has de prendre abans de fer el viatge i durant l’estada al continent africà.
5.32. Des de fa uns 70 anys, els antibiòtics s’utilitzen amb molta eficàcia contra les infeccions, en especial les produïdes per bacteris. Repassa l’apartat sobre els antibiòtics d’aquesta unitat i resol les qüestions que et plantegem a la pàgina següent:
Bacteris de l’espècie Clostridium tetani en fase d’esporulació, en fals color, vistos a través del microscopi electrònic de transmissió.
a) Defineix els termes antibiòtic i antibiosi
b) Quan es va descobrir l’efecte antibiòtic d’algunes substàncies naturals?
c) Fes una breu biografia del científic que va fer aquest descobriment i explica com es va desenvolupar l’experiment.
d) Com es diu el primer antibiòtic que es va aïllar i utilitzar en el tractament de les infeccions? Quin era el seu origen?
e) El primer antibiòtic va tenir una ràpida acceptació i un ús molt generalitzat perquè es va descobrir en un context històric molt determinat. Quin és aquest context?
f) Explica alguns dels principals mecanismes d’acció dels antibiòtics contra els bacteris que els fan eficaços en la lluita contra les infeccions.
g) Explica les diferències entre un antibiòtic específic i un d’ampli espectre.
h) Quin és l’antibiòtic més eficaç contra la grip?
i) La lluita contra les infeccions té en l’actualitat un gran repte: la resistència de diverses soques de bacteris patògens a l’acció dels antibiòtics. En què consisteix aquesta resistència i quina explicació donen els científics a aquest fet?
5.33. Louis Pasteur va obtenir una vacuna contra la ràbia, que és una malaltia causada per un virus que no havia vist mai. Com ho va fer? Què és una vacuna?
Els nadius de Nova Guinea que moren de kuru, les vaques afectades pel mal de les vaques boges, el xais afectats per l’scrapie (tremolor de les ovelles) i les persones que pateixen la malaltia de CreutzfeldtJakob comparteixen una mateixa patologia: una degeneració progressiva del cervell, en el qual es formen abundants forats per destrucció de les neurones. Són les malalties conegudes amb el nom d’encefalopatiesespongiformes i que han estat descrites en diferents grups de mamífers.
Durant molt de temps, la causa d’aquestes malalties era desconeguda i s’havia descartat que els bacteris o els virus en poguessin ser els agents causants.
Cap a l’any 1980, el neuròleg nord-americà Stanley B. Prusiner va sostenir que les encefalopaties espongiformes eren causades per uns agents patògens molt especials, que va anomenar prions (o PrP). Pels seus estudis, Prusiner va rebre el Premi Nobel de Medicina l’any 1997. Un prió està format per una molècula de proteïna sense material genètic (ADN o ARN), és a dir, sense capacitat de replicar-se ni de transmetre res. L’estudi de les malalties priòniques es va accelerar a causa del desenvolupament a Anglaterra de l’epidèmia de l’encefalopatia espongiforme bovina (EEB), i sobretot perquè aquesta malaltia pot passar als éssers humans en forma d’una variant de la malaltia de Creutzfeldt-Jakob (vECJ). El prió responsable de l’EEB és una proteïna de la qual es coneix la seqüència (nombre i ordenació dels aminoàcids que la formen), la conformació (plegament de la cadena d’aminoàcids) i el gen que la codifica.
En les cèl·lules dels animals afectats per malalties priòniques, els prions hi són presents en dues modalitats: una de normal i una altra d’anòmala. Ambdues modalitats de prions tenen la mateixa seqüència d’aminoàcids, però varien en la seva conformació. La forma anòmala es fa resistent als enzims proteases que, en condicions normals, degraden les proteïnes.
La propagació del prió anòmal o patològic és molt subtil: en la membrana de la neurona entra en contacte amb el prió normal, indueix canvis en la seva conformació i el transforma en un nou prió anòmal i, per tant, patològic.
L’anomenada malaltia de les vaques boges (EEB) s’ha convertit en un greu problema sanitari, relacionat amb l’alimentació, que ha causat una gran alarma social i ha fet que es modifiqués sensiblement el consum de productes carnis i que hi hagués canvis importants en les pràctiques de la ramaderia.
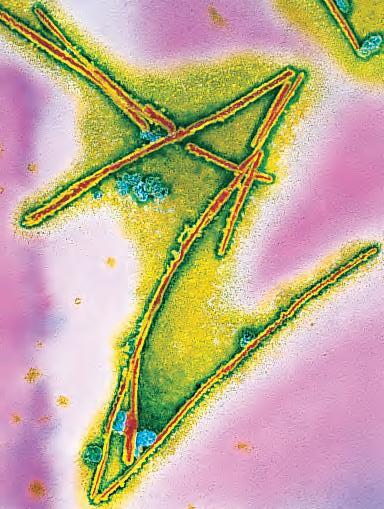
Fotografia al microscopi electrònic, en fals color, de fibril·les associades amb el prió de l’scrapie, una encefalopatia (degeneració de l’encèfal) de les ovelles (60000x).
L’any 1997 es va atorgar el Premi Nobel de Medicina a Stanley B. Prusiner, en reconeixement al seu descobriment del paper infecciós dels prions. RECORDA
Desenvolupament de l’EEB
i de la vECJ
Es fan servir restes d’animals, entre les quals hi ha les restes d’ovelles afectades per la «tremolor de les ovelles» o scrapie, per obtenir farines destinades a la fabricació de pinsos per alimentar el bestiar.
L’epidèmia de les vaques boges
1985: Es detecta per primera vegada la malaltia al Regne Unit.
1986: S’identifica la malaltia com una encefalopatia espongiforme, ja descrita en diversos mamífers.
1987: Els científics relacionen el desenvolupament de la malaltia amb el consum de pinsos que contenen farines càrnies obtingudes amb restes d’ovelles, algunes de les quals estaven infectades per l’scrapie.
Salt d’espècie.
Algunes de les vedelles alimentades amb els pinsos esmentats desenvolupen, cap als 20 mesos d’edat, l’encefalopatia espongiforme bovina, causada per una infecció per prions. Com més vella és la vaca més gran és la concentració de prions. Els òrgans afectats pels prions són el sistema nerviós (encèfal i medul·la espinal), els ulls, les amígdales i l’intestí. No s’ha comprovat la presència de prions ni a la carn (múscul estriat) ni a la llet.
Salt d’espècie.
La ingestió de carn de vaca afectada per l’encefalopatia espongiforme produeix en algunes persones una variant de la malaltia de Creutzfeldt-Jakob.
1988: El govern britànic prohibeix la utilització de carn i ossos d’ovella en la producció de pinsos destinats a l’alimentació del bestiar boví, oví i caprí. Els esdeveniments posteriors permeten afirmar que en moltes explotacions ramaderes aquesta prohibició no es va complir.
1989: A Anglaterra i Gal·les es prohibeix el consum de vísceres de bestiar boví.
1990:En el Regne Unit se sacrifiquen milions de vaques per acabar amb l’epidèmia i es prohibeix l’exportació de carn de vaca.
1991: Es diagnostica el primer cas de la malaltia de les vaques boges a França.
1992: Punt culminant de l’epidèmia al Regne Unit, amb més de cent mil casos. Es diagnostiquen més de mil casos per setmana.
1993: Es detecta la malaltia a Irlanda, Portugal i Suïssa.
1996: El govern britànic anuncia que l’EEB es pot transmetre a les persones com una variant de la malaltia de Creutzfeldt-Jakob. La Unió Europea prohibeix les importacions de carn de vedella britànica.
1997: Es concedeix el Premi Nobel de Medicina a Stanley B. Prusiner, per haver descobert que els prions són els agents causants de diverses encefalopaties espongiformes, com ara l’EEB i l’ECJ.
1998: L’estat espanyol prohibeix les importacions de carn procedent de Portugal, país amb un elevat nombre de casos de la malaltia de les vaques boges.
2000: La Unió Europea prohibeix la venda del cervell, la medul·la espinal, l’espinada, les amígdales i altres vísceres del bestiar boví, parts considerades material específic de risc (MER). Es diagnostica a l’estat espanyol el primer cas d’EEB en una granja gallega. Al cap d’uns mesos se’n detecta el primer cas a Catalunya, al Vallès Oriental. El bestiar susceptible de patir la malaltia (en especial les vaques amb més de 30 mesos) i els materials específics de risc s’han d’incinerar. La manca d’instal·lacions adequades fa difícil complir aquesta mesura i es proposa la incineració d’aquest bestiar en les fàbriques de ciment. El consum de carn de vedella cau en picat i això causa greus problemes als carnissers, als escorxadors i als ramaders.
Segons la hipòtesi més acceptada, l’EEB es va originar al Regne Unit al començament de la dècada de 1980. En aquella època els ramaders, per augmentar els beneficis econòmics, van sotmetre les vaques a embarassos molt seguits per augmentar la producció de llet i de carn. Després van començar a substituir la soja i altres productes d’origen vegetal dels pinsos per farines elaborades amb les restes i despulles (caps, ossos i vísceres diverses) d’animals com ara ovelles, pollastres, les mateixes vaques, etc., que, a vegades, tenien una procedència dubtosa i passaven uns controls sanitaris insuficients. Segons els experts, la clau per a la propagació de la malaltia va ser la preparació de les farines càrnies a baixes temperatures (sense coure-les) i sense utilitzar els dissolvents químics adequats. El resultat va ser que la coneguda «tremolor de les ovelles» (scrapie) va saltar la barrera de les espècies i va afectar les vaques primer i els éssers humans després.
Prions: a les portes d’un nou paradigma
D’ençà que cap al final del segle XIX Louis Pasteur va formular la teoria microbiana de les malalties infeccioses,la medicina ha viscut una edat d’or. La teoria de Pasteur, basada en l’observació de les alteracions microscòpiques que tenen lloc en les cèl·lules infectades, i en la suposició que darrere de cada malaltia infecciosa hi ha un microbi amb capacitat infecciosa, va esperonar el desenvolupament de la ciència de la microbiologia i, en particular, l’estudi de les malalties microbianes. Això va permetre descobrir els gèrmens causants de les malalties microbianes i la manera eficaç de combatre’n una bona part. Al mateix temps, aquella teoria microbiana per a les malalties infeccioses que desenvoluparen Pasteur i els microbiòlegs de l’època clàssica (Robert Koch, Charles L. Laveran, Ronald Ross, etc.) va permetre deixar enrere velles interpretacions sobre les causes de les pestes i epidèmies, entre les quals hi havia la de les miasmes o emanacions pútrides presents en l’aire estantís.
Així és com avança el coneixement científic, a salts. A mesura que s’acumulen fets i observacions que no encaixen amb les teories vigents, els científics miren d’interpretar-les d’acord amb un model explicatiu i predictiu més ampli, amb un nou paradigma científic.Si el nou model explicatiu o paradigma és capaç d’explicar més fets d’observació i anomalies (en relació amb el vigent) es produeix –tal com va assenyalar l’epistemòleg Thomas S. Kuhn– una revolució científica,de manera que el nou paradigma substitueix el vell. Un cop sobrevinguda, la substitució és veloç i ràpidament el nou paradigma desplaça el vell sense que a penes en quedin rastres, especialment en els llibres de text, ja que aquests no són llibres d’història de la ciència, sinó manuals de ciència actual. Després de més d’un segle fecund en descobriments, la teoria microbiana de les malalties infeccioses comença a no explicar-ho tot. Ara els fets que no encaixen han sorgit a partir de l’encefalopatia espongiforme bovina (EEB) o malaltia de les vaques boges. El descobriment per part de Stanley B. Prusiner dels prions (proteïnes –no pas microbis– amb capacitat infecciosa) ens situa molt probablement a les portes d’un avenç radical en el coneixement científic.
Malalties priòniques que afecten l’ésser humà
Produeix una pèrdua de coordinació, seguida de demència i mort. La durada de la malaltia activa és de tres mesos a un any.
Va ser descrita cap a la meitat del segle XX i està relacionada amb les pràctiques de canibalisme ritual que practiquen alguns nadius de Papua Nova Guinea.
Malaltia de Creutzfeldt-Jakob
Pèrdua de coordinació i demència progressiva. Període d’incubació molt llarg i període actiu de la malaltia d’aproximadament un any. Es creu que afecta una persona per milió. Entre el 10% i el 15% dels casos és d’origen genètic, per una mutació en el gen PrP del cromosoma 20. Més rarament la causa pot ser deguda a una infecció relacionada amb actes mèdics o quirúrgics.
Una variant d’aquesta malaltia és considerada la variant humana de l’encefalopatia espongiforme bovina (EEB) i el seu desenvolupament es relaciona amb la ingestió de carn de vaca afectada per l’EEB.
Malaltia de Gerstmann-SträusslerScheinker
Pèrdua de coordinació i demència. És d’origen genètic, per una mutació en el gen PrP del cromosoma 20. S’ha detectat en unes 50 famílies. El període actiu de la malaltia és de 2 a 6 anys.
Insomni familiar letal
Trastorns en la son, alteracions en el sistema nerviós autònom, impossibilitat de dormir i demència. La durada activa de la malaltia és d’un any.
Transmissió genètica per herència en el gen PrP.
S’ha identificat en 9 famílies.
5.34. Què són els prions? Tenen material genètic? De quina manera es reprodueixen?
5.35. Els prions causants de l’anomenada malaltia de les vaques boges provenen del bestiar oví, en el qual provoquen una malaltia freqüent i coneguda de fa segles arreu d’Europa. A diferència del cas de les vaques, la presència d’aquests prions en els ovins no ha aixecat temors, ja que es considera que des de les ovelles no pot passar als éssers humans.
Llegeix el fragment següent de l’article del descobridor dels prions, Stanley B. Prusiner (a la imatge), i escriu-ne un breu comentari.
Com més s’assembli la molècula de PrP [proteïna del prió] patològica a la seqüència de PrP del seu hoste, més gran serà la possibilitat que l’hoste adquireixi la malaltia priònica [...]. La PrP bovina difereix de l’ovina només en set posicions. Contràriament, les diferències de seqüència entre la PrP humana i la bovina són molt més grans; la divergència abasta més de 30 posicions. Davant d’una tal disparitat, la possibilitat de transmissió de la vaca a l’ésser humà sembla bastant remota.
STANLEY B. PRUSINER, «El prió en la patologia»
5.36. Resol l’activitat següent, que està extreta d’una prova de selectivitat: Un alumne de batxillerat va intentar cultivar i reproduir virus en una càpsula de Petri, utilitzant medis nutritius amb aigua, sals minerals, els 20 aminoàcids, glucosa i una enorme varietat de molècules orgàniques. Tot i així no va aconseguir que els virus es reproduïssin. Explica per què i proposa un medi on sí que podrien reproduir-se.
Disseminat per tot el cos i format per diversos tipus de cèl·lules i per una gran varietat de molècules (els anticossos), el sistema immunològic ens defineix i ens protegeix. Ens defineix perquè és capaç de diferenciar el que és propi o aliè a l’organisme, i ens protegeix perquè intenta destruir tot allò que reconeix com a estrany: els antígens, com a agents patògens, cèl·lules d’altres organismes, substàncies químiques diverses, etc. Les cèl·lules essencials del sistema immunològic són els limfòcits. De fet, el sistema immunològic constitueix la tercera barrera de l’organisme, que es caracteritza per la seva especificitat. Les altres dues barreres són la pell i la resposta cel·lular inespecífica.
El sistema immunològic disposa d’una memòria característica que li permet reaccionar de manera ràpida i eficaç contra un antigen amb el qual ja ha estat en contacte. La memòria immunològica es va adquirint al llarg de la vida, però una part és «ancestral» i és transmesa genèticament pels pares.
La immunologia estudia la naturalesa de les malalties infeccioses, els nous enfocaments en el tractament del càncer i en les malalties causades per una mala resposta immunitària, i dóna bases científiques per comprendre l’organització química dels éssers vius.
El sistema immunològic és el conjunt d’òrgans i estructures corporals que intervenen en la immunitat, és a dir, en la capacitat que l’organisme té per oposar-se de manera específica a microorganismes, cèl·lules o molècules alienes (els antígens) mitjançant cèl·lules pròpies o l’elaboració de molècules específiques (els anticossos). De manera més restringida, la immunitat es considera la invulnerabilitat a una malaltia infecciosa.
Les cèl·lules implicades en la immunitat s’originen a la medul·la òssia vermella, circulen per la sang i la limfa, i maduren i s’emmagatzemen
Els glòbuls blancs, que en aquesta fotografia apareixen acolorits en verd, són les cèl·lules encarregades de la defensa de l’organisme.
en el òrgans limfoides. A la medul·la òssia vermella i al tim (òrgans limfoides primaris), les cèl·lules immunitàries adquireixen la immunocompetència o capacitat de distingir entre les molècules pròpies, que toleren, i les alienes, que tracten d’eliminar.
Les cèl·lules immunitàries no estan confinades en un sol punt del cos, ni estan agrupades per formar òrgans concrets, sinó que són mòbils, sense lligams fixos amb altres cèl·lules.
La memòria immunològica permet una resposta més ràpida i eficient quan un antigen penetra de nou a l’organisme. Aquesta memòria és la base de la vacunació (acció preventiva que afavoreix la producció d’anticossos específics).
Amígdala
Intestígros
Medul·laòssia
Venasubclàviaesquerra
Ganglis limfàtics
Plaques de Peyer Melsa
Intestíprim
Òrgans i teixits del sistema immunològic. La medul·la òssia vermella i el tim constitueixen els òrgans limfoides primaris. La resta són els òrgans limfoides secundaris.
Alteracions en el funcionament del sistema immunològic
Com qualsevol òrgan o aparell, el sistema immunològic pot patir alteracions en el seu funcionament que es manifesten en un defecte o una exageració de les reaccions immunitàries considerades normals. Aquestes alteracions poden tenir causes molt diverses: genètiques, fisiològiques, per infecció de microorganismes, per penetració al cos de substàncies o radiacions de l’exterior, etc.
Algunes de les alteracions del sistema immunològic són les següents:
– Hipersensibilitat immunitària o al·lèrgies. Consisteixen en reaccions desmesurades i mal dirigides contra antígens que, en condicions normals, no provoquen reaccions importants.
– Reaccions de rebuig en els trasplantaments d’òrgans. Requereixen l’administració de fàrmacs immunosupressors, com ara la ciclosporina.
– Reaccions d’autoimmunitat (malalties autoimmunes), en les quals l’organisme no reconeix com a propis alguns teixits i, consegüentment, els ataca. En són bons exemples l’esclerosi múltiple (afecta determinades neurones) i alguns tipus de diabetis (destrucció de les cèl·lules del pàncrees que secreten la insulina).
– Immunodeficiències o funcionament incorrecte o parcial d’algunes de les cèl·lules implicades en la resposta immunitària, com ara els limfòcits. S’incrementen la freqüència i la gravetat de les infeccions, i també el desenvolupament de tumors. Els nens-bombolla presenten una mancança, d’origen genètic, en la resposta immunitària. Algunes immunodeficiències es tracten de manera satisfactòria amb el trasplantament de medul·la òssia.
– Malalties immunoproliferatives, que es desenvolupen quan un determinat tipus de cèl·lules immunitàries, com ara els leucòcits, proliferen de manera anormal i exagerada. N’és un exemple la leucèmia.
• Natural (o innata). S’adquireix per mitjans biològics.
– Activa. L’organisme desenvolupa anticossos específics com a resposta a la presència d’un antigen. És perdurable i pot durar tota la vida.
– Passiva. Pròpia del fetus o del nadó. La subministra la mare a través de la placenta o la llet i dura només unes quantes setmanes o pocs mesos, el temps que duren els anticossos.
• Artificial. S’adquireix mitjançant una teràpia o un tractament.
– Activa. Són les vacunes. S’estimula l’organisme perquè produeixi els anticossos específics contra agents patògens que li són subministrats de manera atenuada. Es tracta de mesures preventives, perdurables i, fins i tot, definitives.
– Passiva. S’adquireix amb la seroteràpia, que consisteix a subministrar sèrum sanguini d’un donador immune (un animal el sèrum sanguini del qual conté els anticossos generats per la inoculació prèvia dels microorganismes que causen la malaltia contra la qual es vol lluitar). Serveix com a ajuda si la resposta immunitària activa és insuficient. La seva durada és limitada.
A vegades, hi ha persones que, per una mancança d’origen genètic en el sistema immunològic, han de viure totalment aïllades dels gèrmens que ens envolten.
Fase preliminar
Cèl·lules mare dels limfòcits
Tim
Les cèl·lules immunitàries
Les cèl·lules immunitàries són cèl·lules sanguínies del grup dels leucòcits o glòbuls blancs, que sovint es troben en altres teixits fora dels vasos sanguinis. Segons les característiques del nucli, els leucòcits es classifiquen en mononuclears (amb un sol nucli) i polinuclears (amb un sol nucli polilobulat que, observat al microscopi, fa la impressió de ser múltiple).
Els leucòcits s’originen a la medul·la òssia i mentre que n’hi ha alguns que maduren (adquireixen la immunocompetència) en la mateixa medul·la òssia, d’altres ho fan en els òrgans limfoides.
Els limfòcits són els leucòcits més petits, representen entre el 25 i el 30% del total dels glòbuls blancs i se’n distingeixen dos grups principals, anomenats B i T. Els limfòcits B són els agents de la resposta immunitària humoral: produeixen anticossos o immunoglobulines que inactiven o destrueixen els antígens. Aquests limfòcits s’originen a la medul·la òssia, hi adquireixen la immunocompetència i alguns d’ells es transformen en plasmòcits o cèl·lules plasmàtiques L’activitat dels limfòcits B és moderada pels limfòcits supressors, que n’esmorteeixen la resposta per impedir que es dirigeixi contra elements del propi cos. Els limfòcits T s’originen a la medul·la òssia i adquireixen la immunocompetència en el tim, des d’on passen a la sang. Aquests limfòcits són els agents de la resposta immunitària cel·lular. Entre els limfòcits T hi ha els limfòcits T-8 citotòxics, que reconeixen i destrueixen directament les cèl·lules portadores d’antígens al mateix temps que alliberen substàncies que atreuen leucòcits fagocitòtics i n’estimulen la multiplicació, i els limfòcits T-4 col·laboradors o cooperadors (cèl·lules Th), que reconeixen antígens ancorats a la superfície d’algunes cèl·lules i secreten limfocines que activen la maduració i l’activació d’altres leucòcits, com ara els fagòcits, els limfòcits B, etc. Els granulòcits són leucòcits polinuclears amb el citoplasma d’aspecte granulós, els quals tenen com a missió principal fagocitar elements estranys. Els monòcits són leucòcits que donen lloc als macròfags, les cèl·lules fagocitàries més grans. També s’encarreguen d’eliminar les restes cel·lulars procedents del recanvi normal de les cèl·lules dels diferents teixits.
Cèl·lules amb memòria
Antígens circulants
Limfòcit T
Limfòcit B
Antígens circulants
Cèl·lules plasmàtiques
Resposta immunitària cel·lular
amb memòria
Resposta immunitària humoral
Producció d’anticossos
Fases amb què el sistema immunològic defensa l’organisme
– Quan un antigen (bacteri, cèl·lules alienes, proteïnes estranyes, etc.) penetra en l’organisme, alguns leucòcits l’ingereixen (fagocitosi) i el trenquen en fragments anomenats pèptids antigènics. La fagocitosi es pot desenvolupar en qualsevol part del cos, ja que les cèl·lules que la duen a terme es troben en tots els teixits. Aquesta primera fase de la defensa immunitària s’anomena resposta immunitària inespecífica
– Mitjançant les proteïnes del sistema d’histocompatibilitat humana (HLA), els leucòcits fagocitaris i els pèptids antigènics són disposats en la membrana cel·lular i «mostrats» o «presentats» a les altres cèl·lules del sistema immunològic.
– Els limfòcits T presenten a la seva superfície cel·lular receptors que reconeixen els pèptids antigènics i es poden unir amb ells. Els limfòcits T, activats per aquest reconeixement, es divideixen de manera activa i secreten limfocines que mobilitzen altres cèl·lules del sistema immunològic, els limfòcits B.
– Quan un antigen entra en contacte amb els limfòcits B circulants, aquests es transformen en cèl·lules plasmàtiques que elaboren anticossos. És la resposta immunitària humoral.
– Mitjançant la unió amb els corresponents anticossos, els antígens són neutralitzats i destruïts.
– Alguns limfòcits B i T adquireixen una memòria immunitària, a través de la qual estimularan el sistema immunològic per eliminar el mateix antigen si aquest es presenta de nou.
– Producció de limfòcits T específics que destrueixen les cèl·lules que contenen antígens o les cèl·lules alienes. És la resposta immunitària cel·lular
Antigen fagocitat
Pèptid antigènic
Cèl·lula presentadora de l’antigen
Antigen HLA
Antigen HLA
Complex entre el pèptid antigènic i l’antigen HLA
Pèptid antigènic
Receptor de la cèl·lula T
Divisió i activació dels limfòcits T
Limfòcit T amb molècules receptores del complex entre el pèptid antigènic i l’antigen HLA
Limfocines
Limfòcits T activats
Secreció de limfocines pels limfòcits T
Activació dels limfòcits B
Limfòcits B activats
Neutralització i destrucció de l’antigen
Secreció d’anticossos
Anticossos
Els anticossos són proteïnes del grup de les immunoglobulines, sintetitzades pels limfòcits B, que tenen la funció d’unir-se a un antigen per neutralitzar-lo i destruir-lo. Els anticossos es poden trobar ancorats a la membrana dels limfòcits B (receptors de membrana) o lliures a la sang i a la limfa. De fet, aproximadament el 20% de les proteïnes del plasma sanguini humà són anticossos.
El sistema immunològic pot produir anticossos contra qualsevol cosa, fins i tot contra substàncies sintetitzades per la indústria química. Per explicar la gran varietat d’anticossos, s’accepta la teoria de la selecció clonal
Cada anticòs és codificat per un únic gen constituït per un mínim de tres fragments genètics diferents, triats entre més de cent, que són tallats i col·locats l’un a continuació de l’altre. Els segments d’aquests gens poden mutar a una velocitat molt superior que la resta del genoma. Aquestes dues característiques expliquen la gran varietat d’anticossos que pot produir el sistema immunològic.
Un antigen (etimològicament, ‘el que engendra el seu contrari’) és qualsevol substància que, introduïda al cos, provoca la formació d’anticossos. El cos cataloga com a antigen tot el que li és estrany: virus, bacteris, altres paràsits, cèl·lules i teixits d’altres individus, grans de pol·len, pols i substàncies químiques molt diverses.
En termes immunològics, els antígens són les molècules que desencadenen la resposta immunitària. En realitat, l’organisme respon a una part molt concreta de l’antigen, anomenada epítop, determinant antigènic o centre antigènic. Malgrat que un reduït nombre d’antígens són glúcids, lípids o àcids nucleics, la major part dels antígens coneguts són proteïnes.
Hi ha cinc classes diferents d’anticossos: IgM, IgG, IgA, IgE i IgD. Es distingeixen tant per la seva estructura molecular com per les seves funcions, que en alguns casos no es coneixen prou bé. – IgM o immunoglobulina M. És l’anticòs que es produeix després de la primera exposició a un antigen en la denominada resposta primària i és el primer anticòs que fabrica un limfòcit B. Sorgeix entre uns 10 i uns 14 dies després de l’exposició, per exemple, després d’una primera vacunació. Els IgM són nombrosos a la sang, però normalment no són presents ni als òrgans ni als teixits. Són molècules grans pentàmeres, formades per la unió de cinc peces bàsiques (monòmers) en forma de Y. Activen els macròfags i les proteïnes del complement (proteïnes capaces de matar les cèl·lules a les quals estan units els anticossos).
– IgG o gammaglobulines típiques. Constitueixen el tipus més freqüent d’anticossos presents a la sang, responsables de la resposta secundària. Tenen una estructura molecular típica en forma de Y. Es produeixen després de diverses exposicions a l’antigen (per exemple, després d’una segona dosi de vacuna) i d’una manera més ràpida, en un lapse de tan sols 5 a 7 dies. Activen el complement i s’uneixen als leucòcits fagocitaris. Es troben a la sang i als teixits. Es tracta de l’única classe d’anticossos que passen de la mare al fetus a través de la placenta i protegeixen el nounat en els primers mesos de vida conferint-li immunitat congènita passiva fins que no madura el sistema immunològic.
– IgA. Exerceixen una missió importantíssima davant de la invasió de microorganismes a través de les mucoses. Estan presents a la sang i són transportats cap a la cara externa dels epitelis, de tal manera que es troben en les secrecions respiratòries i intestinals, les llàgrimes, la saliva i la llet materna. Poden existir en forma de monòmers o de dímers moleculars.
– IgE. Són anticossos productors de les reaccions al·lèrgiques agudes o immediates. Són monomèrics. Es troben principalment als teixits, on s’uneixen a la membrana dels mastòcits. El contacte amb un antigen desencadena l’alliberació d’histamina (causant de la reacció al·lèrgica) per part d’aquestes cèl·lules. Encara que no es coneix del tot la seva funció positiva, es creu que poden contribuir a la defensa enfront dels paràsits.
– IgD. Es troben a la sang en concentracions molt petites. Tenen estructura monomèrica. La seva funció no es coneix gaire.
5.3. La selecció clonal dels anticossos
La medul·la òssia de l’organisme elabora de manera contínua una extraordinària varietat de limfòcits B. Cada varietat de limfòcits B porta un sol tipus d’anticossos a la superfície cel·lular. Quan un antigen penetra en el torrent circulatori, l’anticòs d’algun tipus de limfòcit B el reconeix i s’hi acobla. Els limfòcits B triats o seleccionats es divideixen i s’activen, secretant i alliberant anticossos que neutralitzaran l’antigen.
5.4.Les proteïnes d’histocompatibilitat: el carnet d’identitat biològic
A excepció dels bessons univitel·lins, cada individu humà és únic. Les seves proteïnes són el resultat de l’expressió del seu genoma. Les cèl·lules presenten a la superfície de la membrana unes proteïnes que actuen com a marcadors cel·lulars i que reben el nom de proteïnes o antígens d’histocompatibilitat, o sistema HLA (Human Leucocyte-associated Antigen). Aquestes proteïnes són les causants de la identitat biològica de l’individu, un veritable carnet d’identitat
Limfòcit B
Multiplicació per mitosi del limfòcit B amb anticossos de membrana afins a l’antigen.
Limfòcit B activat o cèl·lula plasmàtica
Anticossos lliures
Secció clonal dels anticossos.
Les reaccions al·lèrgiques o reaccions d’hipersensibilitat són reaccions del sistema immunològic que provoquen lesions en els teixits sans. Cada reacció al·lèrgica és desencadenada per un al·lergogen específic. Identificar-lo sol comportar una curosa recerca per part del metge, que sovint recorre a tests cutanis.
Un cop identificat l’al·lergogen, acostuma a ser més eficaç evitar-lo que tractar la reacció al·lèrgica. Quan no és possible evitar entrar en contacte amb l’al·lergogen causant de la reacció al·lèrgica, es pot recórrer a la immunoteràpia. Sovint, però, aquesta pràctica demana un tractament llarg, amb injeccions freqüents de petites quantitats d’al·lergogen. A més, la immunoteràpia no sempre té una efectivitat que compensi clarament el cost i la durada del tractament.
biològic. Les proteïnes d’histocompatibilitat resulten de l’expressió d’un grup de gens que es troba al braç curt del cromosoma 6 i que s’anomena CMH (Complex Major d’Histocompatibilitat). A la superfície d’alguns leucòcits, aquestes proteïnes d’histocompatibilitat duen a terme un paper essencial en les reaccions immunitàries, ja que són les causants dels problemes de rebuig que es produeixen en el trasplantament de teixits i òrgans.
S’anomena hipersensibilitat l’increment de la resposta immunitària fins a nivells perjudicials per a l’organisme. L’al·lèrgia és qualsevol reacció d’hipersensibilitat enfront d’antígens estranys. En les persones al·lèrgiques, alguns elements del sistema immunològic actuen de manera desmesurada contra substàncies que, en condicions normals, són innòcues. Els al·lergògens són els antígens causants d’una al·lèrgia. Els més freqüents són els següents: – la pols, més concretament les restes d’àcars contingudes a la pols; – les espores i el pol·len de les plantes; – algunes restes d’animals, com ara els pèls dels mamífers; – algunes substàncies secretades pels paràsits; – les substàncies contingudes en alguns aliments; – alguns medicaments, com ara la penicil·lina;
– algunes substàncies utilitzades en diversos tipus d’indústries, com ara la cosmètica, la química, la bijuteria, etc.
Les respostes al·lèrgiques es poden produir en diferents parts del cos:
– en les vies respiratòries superiors, on els efectes consisteixen en esternuts i congestió nasal; – en les vies respiratòries inferiors, on provoquen constricció i obturació dels bronquis, tot participant dels símptomes asmàtics; – en la pell, amb coïssor, urticària, lesions cutànies, etc.; – en l’aparell digestiu, on poden provocar nàusees, espasmes abdominals, diarrees i vòmits; – en la sang, on es pot produir una reacció anafilàctica que comporta inflamació, per permeabilitat capil·lar, i contracció de la musculatura llisa, la qual provoca ofec i, a vegades, la mort.
El tractament de les al·lèrgies requereix la determinació de l’al·lergogen causant, que es fa mitjançant proves cutànies, posant sobre la pell del dors o del braç extractes dels possibles antígens. La identificació de l’al·lergogen ve donada per la reacció local que ocasiona enrogiment, inflamació, etc. Una vegada identificat l’al·lergogen, es pot iniciar un tractament hiposensibilitzador inoculant dosis febles i repetides dels al·lergògens causants.
Trasplantament d’òrgans
La substitució d’un òrgan malalt ha estat una de les grans esperances de la medicina. Les primeres transfusions sanguínies, veritables trasplantaments d’un teixit, es van portar a terme al començament del segle XX. Després van venir els trasplantaments de còrnia, ronyó, cor, fetge, pàncrees, pulmons, medul·la òssia, etc.
En l’actualitat, el trasplantament d’òrgans planteja fonamentalment dos problemes: l’obtenció d’òrgans adequats i el rebuig. Pel que fa al primer problema, els òrgans adequats s’obtenen gairebé sempre de cadàvers i, si la conservació és possible, es creen bancs d’òrgans. En molts casos (cor, fetge, pulmons, etc.), la difícil conservació dels òrgans que han de ser trasplantats obliga a actuar amb gran rapidesa, de tal manera que transcorri com menys temps millor entre l’extracció i la implantació d’un òrgan.
La possibilitat de fer servir òrgans procedents d’altres animals, com ara els porcs i els primats (xenotrasplantaments), planteja problemes encara no resolts.
Per evitar o limitar el problema del rebuig, és a dir, la reacció del sistema immunològic del receptor, que reconeix com a estrany l’òrgan o el teixit trasplantat, els trasplantaments requereixen l’administració de substàncies immunosupressores, que disminueixen la resposta immunitària.
Algunes dades amb relació als transplantaments d’òrgans sòlids realitzats als centres sanitaris de Catalunya
El primer transplantament d’òrgan sòlid realitzat a Catalunya va ser de ronyó l’any 1971. Fins a finals de l’any 2007 s’han realitzat un total de 13897 òrgans, un 11% més que el total acumulat a finals de l’any 2006.
Les principals dades de transplantaments són les següents:
Transplantament renal
Període 1971-2007.
Any 2006.
Any 2007.
. . 8813
408 66 de donant (viu)
468 (+15%) 76 de donant viu
Transplantament hepàtic
Període 1984-2007.
Any 2006.
Any 2007.
. 3453
205
211 (+3%) 5 de donant viu
Transplantament de cor
Període 1984-2007.
Any 2006.
Any 2007.
Transplantament pulmonar
Període 1990-2007.
Any 2006.
Any 2007.
. 844
39
39
394
26
43 (+53%)
Transplantament de pàncrees
Període 1983-2007.
Any 2006.
Any 2007.
393
28
26 (–11%)
Extracció de medul·la òssia d’un donant compatible, generalment per punxada en l’os ilíac.
Preparació, selecció i preservació de la medul·la òssia, especialment de les cèl·lules mare que originen les cèl·lules immunitàries. Existeixen bancs de moll de l’os, als quals es demana medul·la que sigui com més compatible millor amb l’aspirant a receptor.
Preparació del receptor, la medul·la òssia del qual, en la major part dels casos, caldrà destruir mitjançant tractaments de quimioteràpia i radioteràpia. Transfusió per via endovenosa de la nova medul·la òssia. El receptor és mantingut en un ambient estèril i al cap de dues o tres setmanes comença a produir noves cèl·lules.
Trasplantament de medul·la òssia.
L’al·lèrgia és una reacció d’hipersensibilitat davant de determinats antígens específics.
Anticòs. Molècula de proteïna, també anomenada immunoglobulina, fabricada pels limfòcits B, capaç de reaccionar amb un antigen específic, bloquejar-lo i destruir-lo.
Antigen. Qualsevol substància molecular capaç de desencadenar la producció d’anticossos.
Apoptosi. Fenomen de mort cel·lular programada. El procés està regulat per senyals procedents d’altres cèl·lules.
Cèl·lula plasmàtica. Limfòcit B madur que fabrica anticossos.
Citoquina. Proteïna soluble secretada, en resposta a un estímul, per cèl·lules immunitàries per regular i estimular la resposta immunitària. En són exemples les limfocines, les interleucines i l’interferó.
Complex superior d’histocompatibilitat (CMH). Grup de molècules –úniques per a cada individu–, també anomenades sistema HLA, que fa un paper destacat en la capacitat de l’organisme per distingir el que és propi del que és estrany. Totes les cèl·lules de l’organisme (tret dels glòbuls vermells) presenten aquestes molècules de superfície. Tota cèl·lula que mostra molècules CMH idèntiques és ignorada (tolerada) i tota cèl·lula que les mostri diferents és rebutjada.
Epítop. Dit també determinant o centre antigènic, és la part més petita de la molècula d’antigen capaç de suscitar la resposta del sistema immunològic.
Fotografia (en fals color) de cèl·lules sanguínes vistes al microscopi electrònic de rastreig. S’hi pot veure un eritròcit (en vermell); quatre plaquetes (en verd clar); i dos leucòcits, un limfòcit (en blau) i un neutròfil (en lila).
Histocompatibilitat. Tolerància entre teixits, determinada sobretot per les molècules del complex superior d’histocompatibilitat (CMH). En la pràctica dels trasplantaments, l’anàlisi de la histocompatibilitat permet avaluar les possibilitats d’acceptació o rebuig.
Immunoglobulina. Anticòs.
Leucòcit. Cèl·lula sanguínia nucleada, també anomenada glòbul blanc. Es divideix en granulòcits o neutròfils, eosinòfils, basòfils, limfòcits i monòcits.
Limfòcit. Cèl·lula principal del sistema immunològic. Hi ha limfòcits B i limfòcits T.
Limfòcit B. També anomenat cèl·lula B. Limfòcit que s’origina i madura en la medul·la òssia vermella. En contacte amb un antigen madura i es transforma en una cèl·lula plasmàtica, productora d’anticossos.
Limfòcit T. Limfòcit que s’origina en la medul·la però madura en el tim. Regeix la defensa de la identitat pròpia de l’organisme i estimula el rebuig del que és estrany. Es divideix en tres grups: cèl·lules T col·laboradores, que ajuden altres cèl·lules a destruir els microbis; cèl·lules T supressores, que inhibeixen l’activitat del sistema immunològic enfront dels propis teixits, i cèl·lules T citotòxiques o assassines, que identifiquen i destrueixen les cèl·lules portadores dels pèptids antigènics.
Macròfag. Cèl·lula defensiva, derivada d’un monòcit, present als teixits, on ingereix, per fagocitosi, els microorganismes que els limfòcits han assenyalat amb anticossos que s’adhereixen a la superfície microbiana.
Mastòcit. Cèl·lula defensiva (en realitat un tipus de leucòcit basòfil), anomenada també cèl·lula encebada, que, en presència d’un antigen, allibera histamina i altres mediadors químics que provoquen la inflamació local dels teixits. Aquesta inflamació afavoreix l’acció del sistema immunològic.
5.37. Copia i completa la taula següent:
Cèl·lula immunitària
Granulòcit
Limfòcit supressor
Limfòcit B
Macròfag
Origen
Funció
5.38. Quins són els òrgans limfoides primaris? Descriu la seva situació anatòmica i la seva funció.
5.39. Defineix vacuna i explica el seu mecanisme d’acció. Esmenta tres de les vacunes que s’administren de manera general als infants. Esbrina l’etimologia del terme vacuna.
5.40. Louis Pasteur és considerat el fundador de la microbiologia moderna i va ser el primer a donar una explicació científica a l’acció de les vacunes. Fent les consultes oportunes, escriu una breu biografia d’aquest científic francès i explica alguna de les seves principals aportacions científiques.
5.41. Copia aquest text i completa’n els espais buits amb les paraules següents: microorganismes, plasma, pròpies, oposar-se, anticossos, memòria, malalties infeccioses, immunologia, reconèixer i immunoglobulines
La … estudia la naturalesa de les … . La immunitat és la capacitat d’… a l’entrada al cos de …, de cèl·lules estranyes o de molècules no … . La immunitat artificial passiva s’adquireix administrant … específics.
El sistema immunològic disposa d’una … que li permet … microorganismes amb els quals ha estat en contacte i intentar destruir-los.
Els anticossos són proteïnes del …, del grup de les … .
5.42. Explica en què consisteix el rebuig en els trasplantaments d’òrgans i què són els immunosupressors.
5.43. Busca informació sobre els òrgans que es trasplanten amb més freqüència. Què són els bancs d’òrgans?
5.44. Explica en quin tipus de malalts o d’accidentats són necessàries les transfusions de sang.
Els fàrmacs immunosupressors són substàncies químiques que disminueixen la resposta immunitària, és a dir, suprimeixen la inflamació, malmeten els limfòcits, etc. Per aquest motiu es poden utilitzar per combatre les reaccions de rebuig en els trasplantaments d’òrgans o en els casos greus d’artritis reumàtica. Tanmateix, com molts medicaments, poden presentar efectes secundaris importants.
L’any 1881, Louis Pasteur va comprovar experimentalment l’eficàcia de la seva vacuna contra el carboncle amb 50 ovelles.
5.45. El carboncle és una malaltia causada pel bacteri Bacillus anthracis que afecta les ovelles i altres espècies de bestiar. Aquests animals s’infecten quan ingereixen les espores d’aquest bacteri juntament amb l’herba que mengen. Louis Pasteur va comprovar que la injecció experimental del bacteri també causa la malaltia als animals i el 1881 en va desenvolupar una vacuna, feta a base de bacteris atenuats. Però el veterinari Hippolyte Rossignol desconfiava de l’eficàcia de la vacuna i va desafiar Pasteur que en fes una demostració amb 50 bens a la seva granja. L’experiment públic, que va ser seguit per periodistes i científics, va representar un èxit rotund per a Pasteur. Digues:
a) Quin és el «problema» que s’intentava resoldre?
b) Quina era la hipòtesi de Pasteur? I la de Rossignol?
c) Segons el teu parer, com s’hauria d’haver dissenyat l’experiment amb 50 bens? Quins resultats caldria esperar segons cadascuna de les dues hipòtesis?
d) A l’època de Pasteur es creia que els bacteris (i les seves espores) apareixien espontàniament a partir de matèria orgànica en descomposició. Digues si aquesta afirmació és certa o falsa i explica per què.
e) Busca a Internet més informació sobre Pasteur i digues quina va ser la seva contribució en la modificació d’aquell estat de coses.
5.46. El gràfic que hi ha més avall mostra la resposta immunitària primària (A) i secundària (B) d’una persona. Les dues respostes immunitàries han estat provocades per l’exposició a un mateix antigen en dos moments diferents separats per un interval de temps.
Intensitat de la resposta immunològica A
1a exposició a l’antigen
Temps
2a exposició a l’antigen
Interval de temps (de dies a anys)
a) A partir del gràfic, argumenta per què algunes malalties infeccioses, com ara el xarampió i la varicel·la, difícilment es contreuen més d’una vegada a la vida.
b) Copia la taula i completa-la:
Funció Immunitat específica o inespecífica?
Neutròfils
Limfòcits B
5.47. A continuació, hi ha una llista d’afirmacions sobre el VIH i la sida.
Digues si són certes o falses. Tingues present que algunes d’aquestes afirmacions inclouen vocabulari no usat en la unitat; per tant, potser hauràs de fer consultes.
a)El VIH és un virus aeròfil.
b)La sida és una malaltia que afecta, principalment, els països més desenvolupats.
c)La sida és una malaltia de transmissió sexual (MTS).
d)El VIH és un virus força contagiós.
e)L’embolcall del VIH és lipoproteic i es destrueix amb detergents.
f)L’embolcall del VIH és lipoproteic i es destrueix amb alcohol.
g)L’embolcall del VIH és lipoproteic i es destrueix a 60 °C.
h)El VIH afecta els limfòcits i els macròfags.
i)El VIH és un tipus de virus d’ADN anomenat retrovirus.
j)L’AZT és una varietat del virus VIH.
5.48. Un noi va a cal metge, ja que sospita que és portador d’una malaltia de transmissió sexual.
Un amic li ha dit que es deu tractar de les anomenades purgacions, una infecció causada pel gonococ Neisseria gonorrhoeae.
El laboratori fa un cultiu amb una mostra de la secreció i creixen els bacteris causants de la malaltia, que tenen la forma de la il·lustració de sota.
El metge diu que és sífilis, i no purgacions. En què es basa per afirmar-ho?
5.49. Observa el dibuix de més avall, que representa l’estructura d’un determinat tipus de virus, i, a continuació, resol les qüestions següents:
a) Identifica les parts assenyalades amb A i B.
b) Descriu, amb un màxim de deu línies, el cicle lític dels virus.
5.50. Un veterinari treballa en l’obtenció d’una vacuna contra la pesta porcina, una malaltia vírica que afecta els porcs i que els provoca la mort. El veterinari, que vol que els virus modificats amb què elabora les vacunes immunitzin els porcs sense matar-los, ha obtingut tres vacunes, A, B i C, i en vol avaluar l’eficàcia.
Per dur a terme l’estudi utilitza 28 porcs, distribuïts en quatre grups, que tenen 50 dies d’edat i un pes similar. Els passos més importants de la recerca han estat els següents:
Extracció de sang i anàlisi d’anticossos. Administració de les vacunes.
Extracció de sang i anàlisi d’anticossos. Administració d’una soca patògena del virus.
Comprovació de l’aparició o no de la pesta porcina clàssica.
a) Respon:
– Quina és la variable dependent?
– Quina és la variable independent?
– Com dissenyaries l’experiment amb els 28 porcs?
b) Suposa que la vacuna A és la que ha resultat més eficaç. Elabora un gràfic que en mostri la resposta immunitària primària i la resposta immunitària secundària. Indica, en el gràfic, el moment d’aplicació de la vacuna i el moment d’administració del virus patogen.
c) Justifica la presència o absència d’anticossos en les anàlisi de sang dels dies 0 i 30.
d) Justifica l’adquisició d’immunitat dels porcs tractats amb una vacuna eficaç.
1. Llegeix aquest text i contesta a les preguntes que hi ha a continuació:
Louis Pasteur va començar a estudiar la ràbia l’any 1880, quan ja havia assolit èxits notables després d’una llarga dedicació a la investigació científica. Va comprovar que es tractava d’una malaltia infecciosa, tot i que en aquest cas, com que era produïda per un virus (de petites dimensions), mai no va poder identificar-lo directament al microscopi. A més, la llarga durada de la incubació de la ràbia i la seva malignitat extrema no li facilitaven gens la feina.
Aviat va adonar-se –per les lesions observables al microscopi– que el virus de la ràbia vivia preferentment a la medul·la i al cervell dels animals malalts. Després, amb el seu ajudant E. Roux, va comprovar que aquell microbi també podia viure a la medul·la espinal del conill, on conservava la virulència, encara que podia perdre’n part si es deixava assecar a l’aire la medul·la contaminada, de manera que un animal vacunat amb aquesta no només no contreia la malaltia, sinó que, si era mossegat per un gos realment rabiós, no emmalaltia. Havia descobert la vacuna contra la ràbia. Al llarg de més d’un any va assajar-la amb gossos, sempre amb resultat positiu, sense atrevir-se –a causa del risc terrible que comportava– a comprovar-ne els efectes en els éssers humans.
De sobte, el juliol de 1885, es va trobar amb un cas que no podia esperar. Joseph Meister, un nen alsacià de nou anys, havia rebut catorze terribles mossegades fetes per un mateix gos rabiós. La mare, que tenia notícia del treball de Pasteur, se’n va anar a París amb el nen malferit. Pasteur, aconsellat per altres metges eminents, va accedir a iniciar el tractament i va començar a administrar al nen, els dies següents, dosis successives dels seus virus atenuats. Finalment, després d’haver passat grans angoixes, va poder comprovar que la vacunació havia estat un èxit complet. Després va tractar de la mateixa manera Jupille, un pastor que havia estat atacat per un animal rabiós i que no havia pogut arribar a París fins una setmana després de la mossegada, i tot i això també va reeixir.
El primer fracàs va esdevenir-se amb una nena, Louise Pelletier, que no va ser tractada fins a 37 dies després d’haver estat mossegada per un gos rabiós. Els sis mesos següents van ser tractades 350 persones, entre elles
19 russos (dels quals només tres es van morir) arribats a París després d’haver estat mossegats, setmanes abans, per un llop rabiós. L’any 1886, de 2761 persones tractades, només 25 havien sucumbit a la malaltia; és a dir, a penes un 1% davant del 40% de defuncions que, segons les estadístiques de l’època, seguien, en els casos no tractats, les mossegades per gossos rabiosos.
a)Quina mena de malaltia és la ràbia?
b)Com sabia Pasteur que era un microbi el que produïa la ràbia, si no l’havia vist mai? Realment es pot veure al microscopi, aquest microbi?
c)On viu el virus de la ràbia?
d)La rabia, és una malaltia contagiosa? Com es transmet?
e)La ràbia, té un període d’incubació curt? El període d’incubació, n’afecta el tractament?
f)Quin és el tractament per curar la ràbia?
g)Hi ha microbis vius a la vacuna de la ràbia?
h)Què és una vacuna?
i)Esbrina per a quines altres malalties víriques i bacterianes es disposa de vacuna.
j)Quina mena de fracassos va tenir Pasteur en l’aplicació de la vacuna antiràbica? Per què?
k)Comenta la frase següent del text: «De 2761 persones, només 25 havien sucumbit a la malaltia; és a dir, a penes un 1% davant del 40% de defuncions…».
2. Uns científics investiguen l’eficàcia de dos anticossos monoclonals (A i B) per combatre un determinat tipus de càncer. Experiments anteriors els han donat indicis que el B és més eficaç, però ho volen comprovar.
a) Enuncia en forma de pregunta quin és el problema a investigar i formula la hipòtesi dels investigadors.
b) Els científics disposen de 60 ratolins als quals han induït el desenvolupament d’un tumor maligne similar al càncer humà que investiguen i de tècniques per estudiar l’evolució d’aquest tumor en els ratolins. Identifica les variables independent i dependent de l’experiment que hauran de plantejar.
c) Planifica un experiment que pugui resoldre la qüestió. No oblidis explicar els controls i les rèpliques que establiries.
3. La penicil·lina és un antibiòtic que es fa servir contra moltes infeccions bacterianes, però alguns bacteris produeixen un enzim, la penicil·linasa, que la inactiva. Observa el gràfic i la taula següents i resol les qüestions que et plantegem a continuació. Al gràfic hi ha representada l’activitat enzimàtica de la penicil·linasa, i a la taula, les activitats de la penicil·linasa en les mateixes concentracions de penicil·lina, però en aquest cas en presència d’àcid clavulànic.
c) És un fet molt comú que les poblacions bacterianes desenvolupin resistència als antibiòtics. Defineix el fenomen i explica mitjançant quins processos evolutius s’adquireix aquesta resistència.
4. Per diagnosticar al·lèrgies a diversos tipus de pol·len i àcars se sol fer una prova que consisteix a aplicar al braç del pacient un seguit de mostres dels possibles al·lergògens. Com a control també s’aplica histamina, substància que intervé en processos inflamatoris. Per a cada mostra es calcula el denominat índex d’histamina:
diàmetre de la pàpula de la mostra índex d’histamina = diàmetre de la pàpula produïda per la histamina
Si l’índex d’histamina és superior a 0,5, es considera que l’individu és al·lèrgic a aquella substància. Suposem que un metge realitza una prova d’al·lèrgia a un pacient i li aplica al·lergògens de dos tipus de pòl·lens i de dos tipus d’àcars:
a) Calcula els índexs d’histamina per als pòl·lens i els àcars de la taula següent i digues a quins d’aquests pòl·lens i àcars és al·lèrgic el pacient.
Diàmetre de la pàpula (cm)
Histamina
Pol·len 1
Pol·len 2
Àcar A
Àcar B
Índex d’histamina
a) Copia el gràfic i representa-hi la corba d’activitat enzimàtica en aquestes condicions.
b) Quin efecte té l’àcid clavulànic sobre l’activitat d’aquest enzim? Per què creus que en molts fàrmacs amb penicil·lina se’ls afegeix l’àcid clavulànic?
b) La histamina és una substància que el cos segrega quan hi ha infecció. El procés inflamatori, ¿comporta algun tipus d’avantatge, des del punt de vista immunològic, en cas d’infecció?
c) Per què algunes substàncies produeixen al·lèrgia? Explica la relació d’aquest fenomen amb el sistema immunitari.
Objectiu
Preparació de frotis de bacteris i fixació, tinció i observació al microscopi.
Material
– Microscopi amb objectiu d’immersió (× 100).
– Nansa de sembra, placa de Petri, portaobjectes, fogonet, iogurt.
– Xilol, blau de metilè, lugol, cristall violeta, safranina i alcohol de 95°.
– Oli d’immersió, paper de filtre i cultius de bacteris.
L’estudi dels bacteris, com el d’altres microorganismes, es realitza mitjançant l’obtenció de cultius purs. Aquesta tècnica requereix:
a) Esterilització o eliminació de tot tipus de microorganismes de l’instrumental que cal fer servir, com ara flascons, càpsules de Petri, tubs enroscats, agulles amb mànec, etcètera. Aquesta operació es realitza a l’autoclau o amb una olla de pressió.
b)Preparació de medis de cultiu estèrils, que poden ser líquids (sucs de carn o de llegums, sèrum, etc.) o sòlids, el més utilitzat dels quals és l’agar nutritiu, que es prepara amb els elements següents: 1g d’extracte de carn; 1g d’extracte de llevat; 5g de peptona; 1g de glucosa; 5g de clorur sòdic; 15g d’agar-agar.
Es dissolen 28 g d’agar nutritiu en 1 litre d’aigua destil·lada.
c) Sembrada dels bacteris (procedents d’altres cultius o de materials en els quals se sospita que hi ha bacteris) en els medis de cultiu, utilitzant agulles o anelles de cultiu (generalment de fil de platí) amb mànec. Per sembrar en medis líquids es fan servir pipetes de Pasteur.
d) Incubació dels medis nutritius sembrats a temperatura constant en estufes de cultiu. La majoria dels bacteris es multipliquen de manera òptima a 36°C o 37°C i al cap de dos o tres dies apareixen les colònies bacterianes, de les quals es poden separar cèl·lules per al seu estudi microscòpic, químic, etc.
b)Observació dels bacteris del iogurt
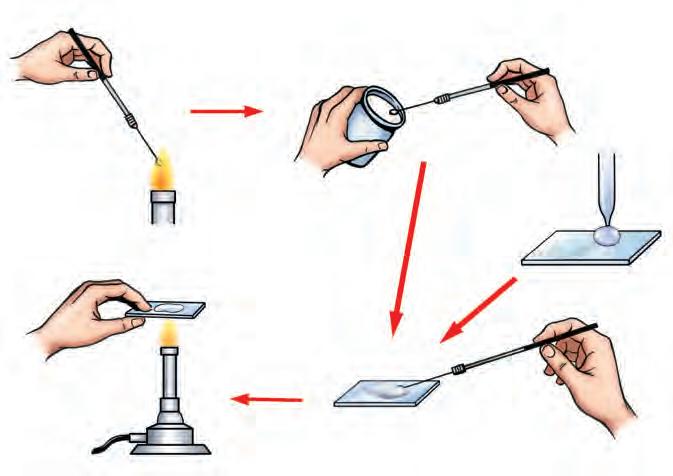
a)Posa una gota d’aigua destil·lada sobre un portaobjectes ben net i, amb la nansa de sembra prèviament flamejada, posa-hi també una petita quantitat de iogurt. Cal diluir-ho bé per evitar que quedin grumolls. Obtindràs un frotis de color lleugerament blanquinós.
b)Tot seguit, passa ràpidament (per evitar que el vidre s’escalfi massa) el portaobjectes sobre la flama del fogonet, fins que s’evapori tota l’aigua de la mostra, i tingues cura de no torrar la fina capa de iogurt formada en fer el frotis. Has d’agafar el portaobjectes amb els dits per les vores de l’extrem que has deixat sense frotis i has de fer l’escalfament per la cara que no té preparació.
c)Inclina el portaobjectes sobre un fons de placa de Petri o cubeta de tincions i deixa-hi caure, tot lliscant sobre el frotis, unes gotes de xilol per eliminar el greix del iogurt.
d)Recolza el portaobjectes sobre les vores de la placa de Petri i deixa-hi caure unes gotes de solució alcohòlica de blau de metilè, de manera que cobreixi tot el frotis. Deixa actuar el colorant durant cinc minuts.
e)Torna a inclinar el portaobjectes sobre el fons de la placa de Petri i renta la preparació deixant-hi caure unes gotes d’aigua destil·lada amb un comptagotes o un flascó rentador, de manera que l’aigua
Bacils grampositius de l’espècie Bacillus anthracis vistos a través del microscopi òptic. S’hi aprecia la característica coloració blavosa que adopten amb la tinció de Gram.
Bacteris gramnegatius del gènere Rhizobium vistos a través del microscopi òptic.
llisqui sobre el frotis. Continua fins que la preparació no deixi anar més colorant.
f)Asseca la preparació pressionant el portaobjectes entre dos doblecs de paper de filtre (tingues cura de no provocar cap fregament, ja que això faria que el paper s’emportés el frotis). En aquest tipus de preparació no és obligatori posar-hi cobreobjectes.
g)Observa la preparació al microscopi a gran augment (× 100). Recorda que aquest és l’objectiu d’immersió i que entre el frotis i l’objectiu has de posar-hi una gota d’oli d’immersió.
1. Què és un frotis?
2. Per què has de flamejar la nansa de sembra abans i després de prendre la mostra?
3. Els bacteris que observes són tots iguals? Fes-ne una descripció breu.
4. Què és el iogurt? Fes una breu descripció de com s’obté.
c)La tinció de Gram dels bacteris
La tècnica clàssica per a la tinció dels bacteris és la tinció de Gram.
a)Sobre un portaobjectes ben net i desgreixat amb alcohol posa una gota d’aigua destil·lada i, amb la nansa de sembra, una petita quantitat d’un cultiu de bacteris a observar, tot estenent-ho una mica.
b)Asseca amb cura la preparació, amb l’escalfor de la flama, afegeix-hi el cristall violeta i deixa’l actuar durant un minut aproximadament.
c)Renta-la suaument amb aigua destil·lada, afegeix-hi lugol i deixa’l actuar un minut.
d)Decolora la preparació amb l’alcohol i tenyeix-la amb safranina durant un minut.
e)Renta-la amb aigua i eixuga-la superficialment amb paper de filtre.
f)La preparació ben seca ja està a punt per ser observada al microscopi.
g)Localitza el camp més adequat per a l’observació i enfoca’l amb l’objectiu d’immersió, sobre el qual has posat prèviament una gota d’oli d’immersió.
h)Amb aquest tenyiment els bacteris grampositius queden tenyits de violeta, mentre que els bacteris gramnegatius es tenyeixen de color rosat.
1.El metabolisme i les vies metabòliques
2.Aspectes energètics del metabolisme
3.Els agents biològics oxidants i els reductors
4.El metabolisme aeròbic i l’anaeròbic
5.Els enzims: catalitzadors biològics
El metabolisme consisteix a degradar o sintetitzar biomolècules i obtenir o consumir energia.
La capacitat de metabolitzar i d’intercanviar matèria i energia ha estat una propietat essencial de la vida des de la seva aparició a la Terra. Els primers organismes ja feien servir l’energia (química o lumínica) i la matèria (aigua, sals minerals, compostos de carboni) de l’exterior per formar-se, mantenir-se i reconstruir-se contínuament.
L’autopoesi (del grec autós, que significa ‘propi’, i poíe¯sis, que significa ‘formació’) és una propietat dels éssers vius que els permet de mantenir la seva activitat i la seva composició dins d’uns límits. Si l’autopoesi cessa, l’organisme mor.
Es diuen catalítics aquells processos en què la velocitat de la reacció canvia a causa de la presència de cossos que es troben, al final de la reacció, en el mateix estat que al principi. Aquests cossos modifiquen només la velocitat de la reacció, però no en canvien la fórmula.
F
RIEDRICH OSTWALD,Manual de química bàsica (1906)
El metabolisme és el conjunt de reaccions químiques que tenen lloc en els éssers vius i mitjançant les quals es degraden i se sintetitzen biomolècules i s’obté i es consumeix energia. Els compostos que intervenen en aquestes reaccions s’anomenen metabòlits: el substrat és el compost inicial i el producte final és el que en resulta. En les reaccions metabòliques, no es produeix l’acumulació de productes intermedis.
El gran nombre i la varietat de reaccions químiques que es produeixen en els éssers vius tenen lloc segons una seqüència determinada i a una velocitat molt regulada. El control del metabolisme el porten a terme els enzims (catalitzadors biològics que fan que les reaccions es produeixin amb la màxima eficàcia), si hi ha disponibilitat dels substrats corresponents.
Les reaccions metabòliques són bàsicament d’oxidació i de reducció, és a dir, de transferència d’electrons entre molècules. L’oxidació d’una molècula està acoblada a la reducció d’una altra. En una reacció d’oxidació, la molècula que es redueix és un agent oxidant, que accepta electrons. En aquestes reaccions, l’energia alliberada pot servir per sintetitzar compostos rics en energia, com ara l’ATP, que posteriorment es poden utilitzar en reaccions que requereixin consum d’energia.
Una via metabòlica és una seqüència de reaccions en la qual el producte final d’una és el substrat de la següent. El catabolisme inclou les reaccions o vies que degraden les molècules a productes més simples. Generalment, són processos d’oxidació que alliberen energia. L’anabolisme o biosíntesi inclou les reaccions que originen molècules més complexes a partir de precursors més simples. En general, són processos de reducció que consumeixen energia.
Els dos tipus de vies metabòliques.
Degradació
Reaccions exergòniques: alliberament d’energia
Biosíntesi
Reaccions endergòniques: consum d’energia
Els anabolitzants
Els anabolitzants són substàncies químiques que incrementen l’anabolisme. Malgrat que el seu ús està prohibit, alguns esportistes els fan servir per millorar el règim d’entrenament i el rendiment esportiu.
La major part dels anabolitzants tenen una estructura química semblant a la dels andrògens o hormones masculines, especialment a la testosterona. Per aquesta raó, els anabolitzants poden produir un efecte virilitzant, més evident en el sexe femení, amb un desenvolupament més accentuat dels caràcters sexuals secundaris propis del mascle: augmenta la pilositat, la veu esdevé més greu, etc.
L’ús dels anabolitzants sense supervisió mèdica pot causar seriosos problemes de salut. Els danys afecten la regulació de la producció d’hormones i el funcionament dels testicles.
A més dels derivats de la testosterona, també s’utilitzen com a anabolitzants el salbutamol i el clenbuterol, aquest darrer emprat il·legalment en la cria del bestiar.
A més dels anabolitzants, per incrementar el rendiment esportiu també es fan servir substàncies com ara la somatotropina, que combinada amb els esteroides augmenta la mida de les cèl·lules musculars, o l’eritropoetina (EPO), que afavoreix la formació d’eritròcits i perllonga la resistència física.
Les vies catabòliques es diu que són convergents, ja que a partir de substrats variats donen lloc a un reduït grup de productes finals, com ara piruvat, acetil-CoA, CO2. Són exemples de vies catabòliques la glucòlisi, la β-oxidació dels àcids grassos, la transaminació i la desaminació, etc.
Les vies anabòliques són divergents, ja que a partir d’un nombre reduït de substrats se sintetitzen diversos productes finals. En general, consumeixen energia. La gluconeogènesi n’és un bon exemple.
El conjunt de reaccions enzimàtiques amb les seves connexions rep el nom de metabolisme intermediari.
El metabolisme basal és la quantitat d’energia que consumeix l’organisme en condicions de repòs físic i mental, per mantenir les funcions vitals: respiració, circulació sanguínia, to muscular, temperatura corporal, etc. El metabolisme basal varia en funció de l’edat, el sexe, el clima, la raça, els hàbits alimentaris i les situacions patològiques.
Membrana plasmàtica
Reticle endoplasmàtic
Parts de la cèl·lula on tenen lloc diferents reaccions metabòliques
Reticle endoplasmàtic: síntesi de lípids; distribució dels productes de la biosíntesi.
Ribosoma: síntesi de proteïnes.
Mitocondri: cicle de Krebs; transport electrònic i fosforilació oxidativa; oxidació dels àcids grassos; catabolisme dels aminoàcids.
Citosol: glucòlisi; bona part de la glicogènesi; activació d’aminoàcids; síntesi d’àcids grassos, etc.
Membrana plasmàtica: sistemes de transport.
Complex de Golgi: formació de membranes i de vesícules secretores.
Lisosoma: conté enzims hidrolítics.
Nuclèol: síntesi de l’ARN ribosòmic.
Nucli: replicació de l’ADN; síntesi de diversos ARN i d’algunes proteïnes nuclears.
En els organismes autòtrofs, com ara les plantes, l’energia necessària per dur a terme l’anabolisme o biosíntesi procedeix de l’energia lumínica captada en la fotosíntesi. Els organismes heteròtrofs, com ara els animals, utilitzen també, en darrer terme, l’energia lumínica, però després d’haver estat transformada i emmagatzemada en forma d’energia química d’enllaç en les molècules orgàniques.
S’entén per energia lliure (G) l’energia continguda en les molècules que participen en una reacció metabòlica. En tots els processos espontanis, els productes finals contenen menys energia lliure que els productes inicials; és a dir, la variació d’energia lliure (∆G) és negativa. Cada metabòlit té una energia lliure de formació estàndard (∆G’0).
Les reaccions exergòniques alliberen o desprenen energia, mentre que les reaccions endergòniques en consumeixen. En el metabolisme, aquestes reaccions tan sols són possibles si van acoblades a reaccions exergòniques.
2.1. Emmagatzemament i transport de l’energia lliure: l’ATP
En les cèl·lules i els organismes, l’alliberament d’energia no sempre es produeix en el moment i en l’indret en què s’ha d’utilitzar. És necessari, per tant, un sistema d’emmagatzemament i transport d’energia lliure que consisteix en la formació d’enllaços moleculars rics en energia, com ara l’esterificació d’un àcid fosfòric sobre un mononucleòtid o algun altre substrat.
L’ATP és la moneda energètica o el vehicle emprat per tota mena de cèl·lules i organismes: actua com a intermediari entre les reaccions que alliberen energia i les que en consumeixen.
L’ATP es forma per unió, mitjançant un enllaç ric en energia, d’una molècula d’ADP i un grup fosfat (Pi). Al seu torn, l’ADP es forma per un procés semblant sobre la molècula d’AMP. La formació d’una molècula d’ATP requereix l’aportació de 7,5 kcal, mentre que la seva hidròlisi allibera la mateixa quantitat d’energia.
ATP + H2O → ADP + Pi (∆G’0= –7,5 kcal/mol)
L’ATP se sintetitza a la membrana interna del mitocondri, en un procés anomenat fosforilació oxidativa, i als cloroplasts durant la fotosíntesi, per un procés de fotofosforilació.
La bioenergètica és la branca de la bioquímica que estudia les reaccions de transferència d’energia en els organismes. En els éssers vius, el procés de formació d’ATP, la molècula energètica universal, està acoblat a l’oxidació de substrats (respiració) o a la captació de l’energia de la llum (fotosíntesi). L’energia emmagatzemada en forma d’ATP és utilitzada en els processos cel·lulars.
Energia lliure de formació
L’energia lliure de formació estàndard (∆G’0) de cada metabòlit es determina en condicions bioquímiques: a 25 °C, pH 7, 1 atm i concentració 1 molal. L’energia lliure d’algunes substàncies és la següent:
a) Estructura química de l’ATP. b) Funció metabòlica de l’ATP.
Substrats
Els adenilats són biomolècules del grup dels nucleòtids que intervenen en l’emmagatzemament i el transport de l’energia a la cèl·lula. L’ATP, trifosfat d’adenosina, conté dos enllaços rics en energia, mentre que l’ADP, difosfat d’adenosina, només en conté un. En la seva formació intervé l’AMP, monofosfat d’adenosina.
La interconversió entre els tres adenilats es pot expressar mitjançant les equacions següents:
6.1. Copia cada mot o sintagma del primer grup i relaciona’l amb un del segon grup:
Primer grup: Acceptor d’electrons, substrat, glucòlisi, anabolisme, consumeix energia, autopoesi, catalitzador biològic.
Segon grup: Catabolisme, automanteniment, endergònic, enzim, biosíntesi, agent oxidant, compost inicial.
6.2. Esmenta dos processos metabòlics que es desenvolupin en el citosol i dos que es desenvolupin en els mitocondris.
6.3. En quin orgànul cel·lular es produeix l’anabolisme o síntesi de les proteïnes?
6.4. Esmenta dos factors que són importants en la regulació del metabolisme cel·lular.
6.5. Copia aquest text i completa’n els espais buits amb les paraules següents: substrats, enzims, anabòliques, sintetitzen, reaccions, reducció, catabòliques, control i transfereixen. El metabolisme és el conjunt de … químiques mitjançant les quals els organismes degraden i … biomolècules. El … del metabolisme, el porten a terme els … i la disponibilitat dels … . La major part de les reaccions metabòliques són d’oxidació i …, i mitjançant aquestes reaccions es … electrons d’unes molècules a unes altres.
Les reaccions … degraden les molècules complexes a productes més simples, mentre que en les … o de biosíntesi s’originen biomolècules a partir de precursors més simples.
6.6. Sabent que l’ATP es coneix amb el nom de «moneda energètica» de les cèl·lules, resol les qüestions següents:
a)Explica el significat de les tres lletres amb les quals es designa aquesta substància.
b)A quin grup de biomolècules pertany l’ATP?
c)En quins processos metabòlics i en quins orgànuls cel·lulars se sintetitza l’ATP?
d)Quina quantitat d’energia s’allibera per hidròlisi d’un mol d’ATP?
e)Esmenta tres processos metabòlics en els quals sigui necessària l’energia emmagatzemada en l’ATP.
6.7. Digues si les frases següents són certes o falses:
a)Reducció és sinònim de captació d’electrons.
b)Evolutivament, la reproducció és un procés previ al metabolisme.
c)En les reaccions espontànies, els productes finals contenen més energia lliure que els productes inicials.
d)Les reaccions endergòniques tenen una variació de l’energia lliure positiva.
e)L’ATP és una heteroproteïna.
f)En el transport actiu a través de la membrana plasmàtica, se sintetitza ATP.
g)La síntesi de proteïnes és un procés catabòlic.
h)El catabolisme dels aminoàcids es produeix en els mitocondris.
6.8. Copia cada mot o sintagma del primer grup i relaciona’l amb un del segon grup:
Primer grup:
Adenilat, anabolitzant, bioenergètica, electròlit.
Segon grup:
Substància amb càrrega elèctrica, emmagatzematge i transport de l’energia, estudi de les transferències energètiques de la cèl·lula, substància química que incrementa el metabolisme.
Els electròlits són substàncies que, dissoltes en aigua, es dissocien i es carreguen elèctricament. Per exemple, l’àcid pirúvic, en presència d’aigua, cedeix un protó i es forma l’ió hidroni (H3O+). Per tant, l’àcid pirúvic queda amb una càrrega negativa, és a dir, en forma de piruvat. Aquest procés és molt freqüent en la química cel·lular, ja que s’esdevé en un medi aquós.
És per aquest motiu que, si bé no és exactament el mateix dir àcid pirúvic que piruvat, en la química cel·lular s’utilitzen indistintament aquests dos noms.
Així mateix, també podem parlar indiferentment d’àcid màlic o de malat, d’àcid fosfòric o de fosfat, etc.
Fosforilació oxidativa amb síntesi d’ATP
Reducció
NAD+ NADH
Oxidació
Biosíntesi
Reducció
NADP+ NADPH
Oxidació
Bona part dels processos metabòlics consisteixen en reaccions d’oxidació-reducció: reaccions d’oxidació de biomolècules, acoblades a reaccions de reducció.
Els electrons o els ions hidrogen alliberats en les reaccions biològiques d’oxidació sovint són transferits enzimàticament a diferents agents oxidants de les cèl·lules.
El NAD+ (dinucleòtid d’adenina i nicotinamida) és el principal agent biològic oxidant en els processos catabòlics, mentre que el seu derivat fosfat NADP+ (fosfat del dinucleòtid d’adenina i nicotinamida) fa la mateixa funció en algunes reaccions catabòliques i en els processos de biosíntesi.
Vies catabòliques
Convergeixen cap a un reduït nombre de productes finals. Són processos d’oxidació que produeixen energia.
Vies anabòliques
Divergeixen de pocs substrats a una notable diversitat de productes finals. En general, són processos de reducció que consumeixen energia.
La major part dels éssers vius actuals (molts procariotes, els protoctists, molts fongs, les plantes i els animals) necessiten l’oxigen en el seu metabolisme energètic. Es diu que són aerobis. La respiració aeròbica és el procés mitjançant el qual s’oxiden molècules per obtenir energia. En aquesta oxidació, l’oxigen és l’acceptor final dels electrons alliberats.
L’ambient aeròbic és la zona on es troba present oxigen lliure. L’aerobiosi és la forma de vida dels organismes aerobis, és a dir, els que viuen en ambients aerobis.
Els organismes anaerobis són aquells que porten a terme el metabolisme energètic en absència d’oxigen lliure. En les reaccions d’aquest tipus de metabolisme es fan servir diferents substàncies (inorgàniques o orgàniques) com a acceptors finals dels electrons en els processos de degradació (oxidació) de molècules. La fermentació és sovint un exemple de reacció anaeròbica. En unes condicions determinades, les cèllules d’organismes aerobis poden obtenir energia mitjançant reaccions anaeròbiques. Per exemple, les cèl·lules musculars dels animals en condicions d’un gran esforç poden obtenir energia mitjançant processos de fermentació.
Alguns bacteris són anaerobis facultatius, ja que no necessiten l’oxigen, però poden viure en ambients que el contenen i, aleshores, l’usen. Altres són anaerobis estrictes i no poden viure en ambients amb oxigen lliure.
L’ambient anaeròbic és aquella zona en la qual no es troba oxigen lliure. El rendiment energètic del metabolisme anaeròbic és molt inferior al del metabolisme aeròbic.
Inorgànic
Font d’energia utilitzada
Energia química d’enllaç: quimiosíntesi
Energia solar: fotosíntesi
Quimioautòtrofs:
–Bacteris de l’hidrogen (H2 i altres).
–Bacteris incolors del sofre (H2S, S2O3 – i altres).
–Bacteris nitrificants (NH3, NO2 –).
Fotoautòtrofs:
–Plantes verdes (algues i plantes superiors).
–Cianobacteris (cianofícies).
–Bacteris sulfurats verds.
–Bacteris sulfurats purpuris.
La respiració aeròbica
La respiració aeròbica va aparèixer a partir d’un determinat moment de la història evolutiva de la vida com un pas endavant cap a l’adequació d’aquesta a una atmosfera rica en oxigen. L’aparició d’aquest nou sistema metabòlic va significar que els organismes van passar de suportar l’oxigen a necessitar-lo.
La respiració aeròbica és una manera eficient d’explotar i canalitzar la gran reactivitat de l’oxigen. Es tracta, essencialment, d’una combustió controlada que trenca les molècules orgàniques i dóna lloc a diòxid de carboni, aigua i una gran quantitat d’energia.
Els tipus metabòlics segons la font d’energia i de carboni.
Quimioheteròtrofs:
Orgànic
–Animals.
–Fongs.
–Protozous.
–Major part dels bacteris.
Fotoheteròtrofs:
–Bacteris purpuris no sulfurats.
La unió enzim-substrat
La unió transitòria de l’enzim amb el substrat facilita la reacció de diferents maneres: orienta i apropa les substàncies que reaccionen, modifica la seva estructura química, trenca els enllaços químics, facilita la formació de nous enllaços, etc. Aquesta reacció representa el trencament d’una cadena polipeptídica per part de la tripsina, proteasa del grup de les hidrolases.
Comparació de la fotosíntesi i la respiració
Un catalitzador és una substància que, present en quantitats molt petites, facilita una determinada reacció química, tot augmentant-ne sensiblement la velocitat.
El catalitzador no es consumeix durant la seva acció i no aporta energia. Per tant, no és que els catalitzadors afavoreixin reaccions energèticament desfavorables, sinó que faciliten aquelles reaccions que són possibles.
Tota reacció química implica un canvi energètic. En les reaccions energèticament possibles de forma espontània s’allibera energia. De la mateixa manera que per encendre un foc hem d’aplicar l’energia addicional d’un llumí, perquè tingui lloc una reacció cal l’aportació d’una energia d’activació addicional. Els catalitzadors fan disminuir l’energia d’activació de les reaccions i, tal com mostren els gràfics de la pàgina següent, també fan disminuir l’energia d’activació de la reacció inversa.
Els enzims són proteïnes que catalitzen les reaccions que tenen lloc en els organismes. Són, doncs, catalitzadors biològics o biocatalitzadors
El fet que les cèl·lules disposin d’enzims permet que les reaccions bioquímiques es desenvolupin a la velocitat adequada per al manteniment de les funcions vitals pròpies dels organismes, en les condicions de temperatura, pH i pressió compatibles amb la vida.
Els enzims (E) s’uneixen temporalment a la substància sobre la qual actuen, el substrat (S), per una regió concreta, el centre d’unió (centre d’acció) de l’enzim, i formen un complex enzim-substrat (ES), a partir del qual es formarà el producte final (P):
Energia d’activació de la reacció directa (no catalitzada)
Energia d’activació de la reacció catalitzada
inicial
Estat de transició
Una de les propietats fonamentals dels enzims és la seva especificitat d’acció, és a dir, només catalitzen determinades reaccions, com ara la ruptura de certs tipus d’enllaços, la transferència de determinats grups funcionals, etc. Sovint tenen especificitat de substrat, és a dir, catalitzen un tipus de reacció només amb un substrat determinat.
El pH i la temperatura són dos factors molt importants en l’activitat dels enzims. Cada enzim té un pH i una temperatura òptims, als quals la reacció catalitzada té lloc a una velocitat màxima, i un interval de pH i de temperatura dins el qual és possible la reacció. Una vegada superats aquests límits, l’enzim deixa de ser funcional.
a) Diagrama energètic d’una reacció química.
b) Influència de la temperatura en una reacció enzimàtica.
Activitat enzimàtica
Desnaturalització
Energia d’activació de la reacció inversa (no catalitzada) Canvi energètic global de la reacció
Estat final
Activitat teòrica
Activitat real
Temperatura òptima
El francès Louis Pasteur (1822-1895) va ser el primer científic que va estudiar l’activitat dels enzims, que ell denominava ferments. Pasteur creia que l’activitat enzimàtica era inseparable de la cèl·lula viva. Va ser l’alemany Eduard Buchner qui va demostrar, l’any 1897, que la fermentació pot produir-se sense la presència de cèl·lules vives.
Entrat ja el segle XX, l’alemany Emil Fischer n’observà l’especificitat i l’any 1926 el nord-americà James B. Sumner fou el primer d’obtenir un enzim (la ureasa) en estat pur, és a dir, cristal·litzat. Per aquest motiu va compartir el Premi Nobel de Química de l’any 1946 amb els seus compatriotes Wendell M. Stanley (que l’any 1935 havia estat el primer de cristal·litzar un virus, el del mosaic del tabac) i John H. Northrop (que, amb els seus treballs a la dècada de 1930 amb la tripsina i la pepsina, va acabar de demostrar que els enzims són proteïnes).
Temperatura
Alguns coenzims importants en el metabolisme cel·lular són els següents:
– Donadors-acceptors d’hidrògens o electrons en les reaccions d’oxidacióreducció:
NAD+ i NADH; NADP+ i NADPH; FAD+ i FADH2
– Donadors-acceptors de grups fosfat: AMP, ADP i ATP.
– Coenzim A: transportador de grups acil.
Alguns inhibidors enzimàtics importants són els següents:
– El cianur, que paralitza l’oxidació aeròbica.
– Els gasos «nerviosos» i els insecticides fluorats o fosforats, que alteren o bloquegen l’impuls nerviós.
– Els metalls pesants, com ara el plom o el mercuri, que s’uneixen a determinats enzims i els inutilitzen.
– Molts antibiòtics, que bloquegen l’acció de determinats enzims bacterians.
5.2. Cofactors, coenzims i vitamines
Per ser actius, alguns enzims necessiten, a més del component proteic, la presència d’alguna substància no proteica, el cofactor, que en uns casos és un ió metàl·lic (Zn2+, Mg2+, Mn2+, Cu2+, etc.) i en altres, una substància orgànica que s’anomena coenzim.
En general, la unió de l’enzim amb el coenzim és superficial i efímera, però altres vegades aquesta unió és molt més estable pel fet que el coenzim és la part no proteica (grup prostètic) d’una heteroproteïna o proteïna conjugada (enzim complet). En aquests casos, la molècula completa o enzim funcional s’anomena holoenzim, mentre que la part exclusivament proteica és l’apoenzim
Sovint, els coenzims actuen com a portadors temporals de grups funcionals (fosfats, hidrògens, amino, acil, etc.) d’una molècula a una altra; és a dir, actuen alternativament com a donadors i acceptors.
Les vitamines són substàncies que l’organisme és incapaç de produir, tot i que les necessita, encara que en quantitats minúscules, per al desenvolupament d’algunes funcions cel·lulars bàsiques.
Actualment sabem que això és així perquè moltes de les vitamines constitueixen, de fet, una part de la molècula d’algun coenzim. Aquest és el cas, per exemple, de la tiamina (B1), de la riboflavina (B2), de l’àcid pantotènic i de la nicotinamida, vitamines que formen part d’algun dels coenzims més importants en el metabolisme cel·lular.
Les vitamines són substàncies químiques molt diferents les unes de les altres. Es tracta de substàncies orgàniques sense valor energètic que, juntament amb alguns minerals, són micronutrients. Això vol dir que tot i ser indispensables, encara que en quantitats molt petites, per al bon funcionament de l’organisme, aquest no pot sintetitzar-les i les ha de rebre mitjançant l’alimentació.
Les vitamines es classifiquen segons la seva solubilitat en vitamines hidrosolubles (solubles en aigua) i liposolubles (solubles en greixos). Algunes vitamines liposolubles poden causar trastorns en cas de sobredosi. Les malalties causades per una avitaminosi (carència d’alguna vitamina) eren freqüents en els segles passats, si bé se solien curar ràpidament quan es tornava a aportar a l’organisme la vitamina que faltava. L’any 1757, el metge naval britànic James Lind va comprovar que la ingestió de fruita fresca, especialment els cítrics com ara la llima i la llimona, prevenia l’escorbut, una malaltia greu causada per la carència de vitamina C que era molt freqüent entre els mariners que passaven llargues temporades embarcats. El cèlebre navegant James Cook se’n va fer ressò i obligà la seva tripulació a prendre fruita fresca cada dia. Només un dels 118 homes que formaven la tripulació va morir d’escorbut, malgrat haver estat embarcats durant tres anys i mig. Ara bé, la vitamina C, la deficiència de la qual és la causant de l’escorbut, no fou aïllada fins al 1928 pel bioquímic
Albert Szent-Györgyi. Però la vitamina C no fou pas la primera a ser descoberta. La primera va ser la vitamina B1 o tiamina, la qual va ser aïllada a partir de la pellofa de l’arròs l’any 1912 pel bioquímic polonès Casimir Funk. D’aquesta manera, Funk culminava les recerques del metge holandès Christiann Eijkman, que havia estudiat a Indonèsia una greu malaltia humana provocada per la carència de vitamina B1: el beri-beri. Eijkman havia descobert que els pollastres alimentats amb arròs blanc –sense pellofa– emmalaltien de polineuritis, mentre que tant aquests pollastres malalts de polineurutis com els humans afectats pel beri-beri sanaven quan eren alimentats amb arròs integral. Com que la substància en qüestió era una amina i era indispensable per a la vida, Casimir Funk la va anomenar vitamina. Encara que la major part de les vitamines no són pas amines, el nom ha perdurat. Les malalties per carència de vitamines són encara comunes entre les persones mal nodrides o que segueixen dietes poc variades.
Vitamina Important per a La seva carència pot provocar
A (retinol)
D (calciferol)
E (tocoferol)
K (filoquinona)
B1 (tiamina)
B2 (riboflavina)
B6 (piridoxina)
B12 (cianocobalamina)
C (àcid ascòrbic)
PP (niacina)
La vista, el creixement, la pell, les mucoses i la reproducció.
La calcificació dels ossos i la mineralització de les dents i els ossos.
La protecció dels glòbuls vermells i com a antioxidant.
La coagulació de la sang.
El sistema nerviós, l’aparell digestiu i el metabolisme de glúcids i proteïnes.
El creixement i el metabolisme de vitamines i hidrats de carboni.
El metabolisme de les proteïnes i la formació dels glòbuls blancs.
La formació dels glòbuls vermells i blancs de la sang.
La calcificació dels ossos i de les dents i la creació de defenses naturals de l’organisme.
La pell i els processos metabòlics.
Aturada del creixement, ceguesa i infeccions diverses.
Disminució del creixement, raquitisme i malformacions òssies.
Anèmia.
Hemorràgies i trastorns digestius.
Retard del creixement, trastorns cardiovasculars i beri-beri.
Aturada del creixement, fissures a la pell i lesions oculars.
Dermatitis i inflamació de la pell.
Anèmia.
Escorbut, símptomes de fatiga, fragilitat òssia i hemorràgies a les genives.
Diarrees, dermatitis i pel·lagra.
El seu excés pot provocar
Mal de cap, engrossiment de la melsa, els ossos i els ronyons.
Debilitat, nerviosisme, dipòsits de calci, insuficiència renal…
Augment de les necessitats de vitamina K.
Necessitats dia (adult) Alguns aliments que en contenen
900 µg Espinacs, pastanaga, albercoc, llet, fetge de peix, ous…
10 µg Llet, rovell d’ou, mantega… (Els raigs solars ajuden a sintetitzar-la.)
10 mg Peix, margarina, mantega, ous, olis vegetals, olives, cereals…
65 µg Carn, fetge, llet, peix, espinacs, tomàquet…
1,2 mg Mongetes, pa, cigrons, blat, civada, carn de porc, menuts, patates…
1,5 mg Carn, ous, ronyons, fetge, làctics, peix, llegums, verdures, fruita…
2 mg Carn, peix, rovell d’ou, mongetes, patates, plàtans, cereals…
2 mg Menuts, carn, ous, peix, llet…
60 mg Cítrics i altres fruites, patates, pèsols, cols, tomàquets, enciam, cebes, espinacs, coliflor…
16 mg Pollastre, vedella, lluç, llet, mongetes seques, fruita seca, cereals…
Retroalimentació negativa.
El producte final Z inhibeix el primer enzim exclusiu de la seva síntesi i controla la pròpia producció en la cèl·lula.
5.3. La regulació de l’activitat dels enzims. La inhibició enzimàtica
A més dels factors externs, com ara la temperatura, la pressió o el pH, la velocitat de la reacció enzimàtica depèn de la concentració de substrats, de cofactors i coenzims i de la concentració dels productes finals. Aquests productes, segons els casos, poden disminuir la velocitat de la reacció, aturar-la o fins i tot fer que es produeixi en sentit contrari.
L’acció dels enzims pot estar afectada o inhibida per determinades substàncies, anomenades inhibidors. En la inhibició competitiva, la substància inhibidora s’uneix a l’enzim a través del centre d’unió, de manera que el substrat troba el lloc ocupat i la reacció enzimàtica no es produeix. En la inhibició no competitiva, l’inhibidor s’uneix a l’enzim per un punt diferent al centre d’unió i canvia la configuració d’aquest.
Sovint, en una via metabòlica, l’enzim que catalitza el primer pas, o el més lent, actua com a regulador dels altres i determina la velocitat de tot el procés. En molts casos, el producte final d’una via metabòlica és el que inhibeix l’enzim regulador, en un procés d’estalvi energètic que es denomina regulació negativa o retroinhibició. És per aquesta via, en primera instància, que es regula o modula l’activitat enzimàtica, amb la qual cosa s’aconsegueix que tot el metabolisme cel·lular sigui un procés d’economia regulada rigorosament.
a) Inhibició competitiva i inhibició no competitiva.
b) Inhibició al·lostèrica.
Inhibidor no competitiu
Molts enzims reguladors són enzims al·lostèrics, que contenen, a més del centre d’unió, un segon centre receptor, el centre regulador, on pot associar-se una molècula de modulador (que pot ser un inhibidor o un estimulador).
Els enzims s’anomenen mitjançant un nom compost per tres partícules: un prefix, un infix i un sufix. El prefix denomina el substrat sobre el qual l’enzim actua. L’infix descriu l’acció específica que l’enzim catalitza, però s’omet quan aquesta acció és una hidròlisi. El sufix és sempre el mateix: -asa Així, l’ATP-glucofosfotransferasa és l’enzim que catalitza la transferència d’un grup fosfat de l’ATP a la glucosa.
Els enzims es classifiquen en diverses classes, segons la seva acció catalítica específica:
• Oxidoreductases. Catalitzen reaccions d’oxidació-reducció, és a dir, de transferència d’electrons o d’àtoms d’hidrogen entre dos substrats. A aquest grup pertanyen les deshidrogenases i les oxidases.
• Transferases. Catalitzen reaccions de transferència d’un grup químic diferent de l’hidrogen, com ara el grup fosfat o el grup amino, d’un substrat a un altre.
• Hidrolases. Catalitzen reaccions d’hidròlisi o de trencament de molècules per acció de l’aigua, com ara el trencament del glicogen a glucosa.
• Liases. Catalitzen reaccions d’addició de grups funcionals (alcohol, amino, etc.) sobre els enllaços dobles.
• Isomerases. Catalitzen reaccions d’isomerització o de reordenació interna dels àtoms d’una molècula amb formació d’un isòmer.
• Ligases o sintetases. Catalitzen reaccions de formació de dues molècules utilitzant l’energia continguda en els enllaços pirofosfat de l’ATP o d’altres vectors energètics semblants.
5.4. Cinètica enzimàtica
La velocitat d’una reacció enzimàtica (v) augmenta en augmentar la concentració del substrat fins a assolir un valor màxim (Vmàx ).
En aquest punt, els centres d’unió al substrat de totes les molècules d’enzim estan ocupats de manera que la velocitat de la reacció es veu limitada per la velocitat del procés catalític, tal com mostra el gràfic. Aquesta corba, denominada corba de Michaelis-Menten –en honor dels científics Leonor Michaelis i Maud Menten, que van dur a terme aquests estudis–, correspon a l’expressió següent:
v = Vmàx. [S / S + KM]
en la qual S és la concentració del substrat i KM, o constant de Michaelis, és un paràmetre específic de cada parella enzim-substrat. D’aquesta equació es desprèn el fet que quan la concentració del substrat és igual al valor de la constant de Michaelis (KM), la velocitat de la reacció és la meitat de la velocitat màxima.
Representació de l’equació de MichaelisMenten.
6.9. Explica el significat dels termes següents: anaerobi, quimiosíntesi, oxidació i reducció.
6.10. Explica quin tipus d’energia i quina font de carboni fan servir els grups d’organismes següents: les plantes, els bacteris nitrificants, els fongs, les cianofícies i els animals.
6.11. Què és un catalitzador? Com actua?
6.12. Copia aquest text i completa’n els espais buits amb les paraules següents: inhibir, disminuir, cofactor, proteïnes, coenzim, d’unió, component, reaccions, transitòria, orgànica i consumeixen.
Els enzims són … que catalitzen les … metabòliques. Els enzims no es … durant la seva acció i la seva funció és … l’energia d’activació de la reacció.
La unió … entre un enzim i un substrat es produeix pel centre …. Sovint, per ser actius, els enzims necessiten un …, com ara un ió metàl·lic, que s’anomena …, o una substància …, que rep el nom de….
Algunes substàncies, com ara el cianur, alguns antibiòtics, etc., poden … l’acció dels enzims.
6.13. La taula que hi ha a l’esquerra mostra els resultats obtinguts en una investigació per comprovar l’efecte de l’amilasa de la saliva sobre el midó a diferents temperatures. El signe més (+) indica els casos en què s’ha comprovat la presència de midó amb la prova del lugol.
a) Digues en què consisteix la prova del lugol i quins resultats dóna.
b) Interpreta els resultats que s’han obtingut a 10°C, 20°C i 30°C, i representa’ls en un gràfic.
c) La prova del lugol en el tub on hi ha la barreja de saliva i midó a 60°C sortiria positiva si la féssim al cap d’una hora. Explica per què passa això.
d) Caldria alguna altra prova de referència per demostrar que la digestió del midó és deguda a l’amilasa de la saliva? Intenta explicar com ho faries.
6.14. Quina és la diferència des del punt de vista químic entre un cofactor i un coenzim?
6.15. Enumera i explica quins són els principals factors que afecten l’activitat enzimàtica.
6.16. Quins tipus de reaccions catalitzen els enzims del grup de les isomerases? Posa’n alguns exemples concrets.
6.17. Fixa’t bé en el gràfic de la dreta i contesta a les preguntes següents:
a) Quina és la definició de pH òptim i d’interval de pH d’un enzim?
b) Quin enzim tindrà una activitat millor en medis àcids? I en medis bàsics?
c) Quin d’aquests enzims seria més eficaç a l’interior de l’estómac?
6.18. Què és l’escorbut? Per què es produeix? Consulta una enciclopèdia i esbrina la importància que tingué en el passat. Quins factors de l’alimentació actual contribueixen a fer que aquesta malaltia sigui menys freqüent? Digues si les fruites i verdures cuites tenen vitaminaC i raona la resposta.
6.19. Observa l’esquema de la dreta. Els bacteris sintetitzen els aminoàcids isoleucina, lisina, metionina i treonina a partir de l’àcid aspàrtic o aspartat. Les fletxes vermelles indiquen els punts de retroalimentació negativa del procés (els rectangles vermells són els inhibidors).
La reacció inicial del procés està catalitzada per tres enzims diferents.
D’acord amb l’explicació anterior, fes les activitats següents:
a) Explica en termes d’activitat enzimàtica el significat d’aquest procés i els possibles avantatges o desavantatges que representa per a la cèl·lula.
b) Repassa les fórmules dels quatre aminoàcids i suggereix les possibles rutes de síntesi a partir de l’aspartat (un altre aminoàcid).
Influència del pH en tres enzims diferents.
6.20. Copia les frases següents i escriu al costat de cadascuna si és certa o falsa:
a)Un agent oxidant és una molècula que cedeix electrons.
b)Les vies catabòliques són convergents.
c)La glucòlisi és una via anabòlica.
d)Les reaccions endergòniques alliberen energia.
e)Les reaccions d’hidròlisi consisteixen en el trencament de les molècules en presència d’aigua.
f)L’ATP conté dos enllaços rics en energia.
g) Catabolisme és sinònim de biosíntesi.
h)En totes les reaccions espontànies, els productes finals contenen més energia que els productes inicials.
6.21. Defineix el concepte d’energia lliure de formació d’un metabòlit i escriu amb quin símbol s’expressa i amb quina unitat es mesura. Digues, també, quin és el valor d’aquesta energia lliure per a la glucosa i per al piruvat.
6.22. Escriu el nom i la sigla d’un dels principals agents oxidants de la cèl·lula. Copia i completa la reacció de sota i indica en quin sentit es produeix oxidació i en quin, reducció.
NAD+ NADH
6.23. Digues en quins processos del metabolisme s’origina ATP i en quins se’n consumeix.
6.24. L’amoníac (NH3) i el diòxid de carboni (CO2) són productes que s’originen durant el metabolisme i que cal eliminar. Digues en quins processos s’originen i com s’eliminen.
6.25. Quins són els tres components químics diferents de l’ATP? Quina quantitat d’energia és necessària per sintetitzar una molècula d’ATP a partir d’una molècula d’ADP?
6.26. Copia el quadre de sota, referent a les característiques generals de les vies metabòliques, i escriu sí o no en cada casella, segons els casos.
Via anabòlica Via catabòlica
Generalment via convergent
Generalment via divergent
Hi predominen les reaccions d’oxidació
Hi predominen les reaccions de reducció
Cicle de Krebs
Gluconeogènesi
Fermentació
Transaminació
6.27. Copia cada mot o sintagma del primer grup i relaciona’l amb un del segon grup.
Primer grup:
Organisme anaerobi, donador de grups fosfat, transportador de grups acil, donador d’electrons, centre d’unió.
Segon grup: ATP, acetil-CoA, centre catalític, anoxibiosi, agent reductor.
6.28. Digues a quin grup d’enzims pertany la lactasa que catalitza la reacció següent:
lactosa + H2O galactosa + glucosa
lactasa
6.29. Explica quina acció porten a terme el NAD+ i el coenzim A. Explica quina relació tenen els coenzims amb les vitamines.
6.30. Explica quines són les diferències entre els organismes anaerobis facultatius i els organismes anaerobis estrictes.
6.31. Explica el significat de les frases següents:
a) L’autopoesi precedeix les altres dues propietats característiques dels organismes, la reproducció i l’evolució.
b) Les reaccions metabòliques sovint apareixen acoblades.
c) La respiració és una combustió controlada de la matèria orgànica.
6.32. Completa l’esquema de sota, que representa les dues grans funcions de la biosfera, amb els termes correctes.
6.33. Què són els anabolitzants? De quina hormona deriven bona part de les substàncies anabolitzants? Quins efectes secundaris provocarà, en una esportista, l’administració d’anabolitzants derivats de la testosterona?
6.34. Defineix el concepte metabolisme basal i explica quins factors el fan variar.
6.35. Qualsevol persona consumeix, sense fer cap esforç extraordinari, entre 1000 i 2000 kcal diàries. Aquesta energia l’obtenim de la degradació dels aliments ingerits, però podem resistir sense menjar un període de temps llarg (uns dos mesos de mitjana) perquè tenim reserves energètiques. El magatzem d’energia d’una persona d’uns 75kg és d’unes 150000 kcal.
a) Construeix una taula i indica on guarden els mamífers i les plantes superiors aquesta energia (en quins teixits) i de quina manera (en quins compostos moleculars).
b) Quina quantitat d’ATP cal per emmagatzemar aquesta energia sabent que 1mol d’ATP pesa 507g i que en hidrolitzar-se a ADP i Pi dóna 7,34kcal?
c) Fes un esquema de les vies metabòliques usades per una cèl·lula animal per obtenir l’ATP.
6.36. Consulta el quadre de les 10 reaccions del procés de la glucòlisi, a la pàgina 281, i digues a quina classe pertany cadascun dels enzims allí indicats.
1. Copia la il·lustració del quadre general del metabolisme i completa-la amb els termes adequats.
2. Copia el quadre de sota, que és un resum parcial dels tipus metabòlics més habituals, i completa’l.
Quimioheteròtrof
Fotoautòtrof
Quimioautòtrof
3. Explica quin és el substrat i quin és el producte final de les vies metabòliques següents: – β-oxidació – fermentació – glucòlisi
4. Respon a les preguntes següents:
a) Quin és el principal metabòlit en el qual convergeixen les vies catabòliques de les biomolècules o principis immediats?
b) En quines vies metabòliques i a partir de quin substrat se sintetitza ATP?
Objectius
a) Estudi pràctic de l’activitat enzimàtica.
b) Avaluació dels factors que influeixen en l’activitat enzimàtica.
c) Identificació de la vitamina C.
Material
– Deu tubs d’assaig.
– Un encenedor.
– Una estufa de cultiu (o els elements necessaris per fer un bany maria).
– Una nevera.
– Midó.
– HCl concentrat (1 molar).
– Solució de KOH.
– Lugol.
– Solucions A i B de Fehling.
– Flascó amb comptagotes.
– Escalfador.
– Fetge fresc.
– Patata fresca.
– Aigua oxigenada.
– 2,6-diclorofenol-indofenol (en dissolució al 0,2%)
– Suc de llimona.
– Llimonada i altres sucs de fruita comercials.
a) Acció enzimàtica de la ptialina
La ptialina és un enzim que es troba a la saliva i que actua sobre el midó. Amb aquesta activitat, intentaràs esbrinar com la temperatura, el pH, els àcids i les bases influeixen en l’acció d’aquest enzim.
1) Comença preparant, en calent, l’engrut de midó, que deixaràs refredar fins a la temperatura ambient.
2) Agafa cinc parells de tubs d’assaig i tira-hi una mica de saliva en cadascun. A continuació, fes les manipulacions següents en els diferents parells de tubs:
– Afegeix 4cm3 de midó al primer parell de tubs i escalfa’ls fins als 37°C, al bany maria o bé en una estufa de cultiu.
– Afegeix la mateixa quantitat de midó al segon parell de tubs i posa’ls en una nevera.
– Aboca unes quantes gotes de HCl concentrat als tubs del tercer parell i al cap de dos minuts afegeix-hi el midó, després d’haver-ne neutralitzat el contingut amb unes gotes de solució de KOH. Posa aquests tubs en una estufa a 37°C.
– Fes que els tubs del parell número quatre arribin a l’ebullició. A continuació, un cop refredats a temperatura ambient, afegeix-hi el midó i incuba’ls a 37°C.
– Els tubs del cinquè parell et serviran de control: només hi posaràs midó.
Passats uns 15-20 minuts d’incubació, podràs observar-ne els resultats. Caldrà que facis el mateix tractament en cadascun dels cinc parells de tubs. Afegeix unes gotes de lugol al primer tub per comprovar –si es tenyeix de color blau violeta– la presència del midó (reacció característica). Sotmet el segon tub a la prova de Fehling: afegeix-hi 1 cm3 de solució de Fehling A i 1 cm3 de solució de Fehling B; tot seguit, escalfa-ho moderadament. La prova és positiva quan l’intens color blau inicial vira a un color bru ataronjat, el qual testimonia la presència de sucres reductors (monosacàrids i disacàrids). Si el color blau persisteix, la prova és negativa.
D’acord amb els resultats, fes un breu informe sobre quina és l’acció de la ptialina sobre el midó i de quina manera hi influeixen la temperatura i el pH.
b) Factors que influeixen en l’activitat enzimàtica
El peròxid d’hidrogen (H2O2) és una substància molt tòxica que es forma en alguns processos metabòlics. La catalasa és un enzim present en les cèl·lules que catalitza l’escissió del peròxid d’hidrogen en aigua i oxigen:
Procediment
Agafa vuit tubs d’assaig; posa un trosset d’uns 3 o 4 mm de fetge en quatre tubs i un dau de patata de mida similar en els altres quatre.
Agrupa els vuit tubs en quatre parelles formades per un dels tubs que contenen fetge i un dels que contenen patata.
No apliquis cap tractament a la primera parella de tubs.
Guarda la segona parella a la nevera o, millor, en un bany amb aigua i sal (només l’hauràs de treure just abans d’usar-la).
Agafa la tercera parella de tubs i afegeix-hi aigua destil·lada. Fes bullir els tubs durant 10 minuts, preferentment al bany maria, i després decanta l’aigua.
Posa HCl a la quarta parella de tubs, amb molta cura, i al cap d’uns minuts decanta’ls i renta el fetge i la patata amb aigua destil·lada.
Finalment, cobreix les mostres dels vuit tubs d’assaig amb aigua oxigenada, fes un quadre com el que hi ha a continuació i anota-hi, juntament amb tots els passos fets, allò que observes. Després, interpreta els resultats i tracta d’explicar quins factors modifiquen l’activitat enzimàtica i per què la modifiquen.
c) Identificació de la vitamina C
La vitamina C s’oxida (perd hidrògens) fàcilment. Per aquest motiu, es pot identificar amb un colorant capaç de captar aquells hidrògens. El colorant canviarà de color, ja que el medi passarà de ser àcid a ser bàsic. Aquest colorant, la dissolució del qual cal preparar al 0,2%, és el 2,6-diclorofenol-indofenol. Els seus colors són els següents: vermellós en medi àcid i blau en medi alcalí. En presència de vitamina C, que és antioxidant, es decolora.
Procediment
Agafa uns quants tubs d’assaig i posa 2 o 3 cm3 de suc de llimona en un tub i 2 o 3 cm3 de diferents sucs i refrescos en els altres. Afegeix a cadascun dels tubs una o dues gotes de 2,6-diclorofenol-indofenol.
Resultats i interpretació
Observa què és el que passa en cada tub i redacta un breu informe interpretatiu que n’expliqui els successius canvis de color.
1.Els glúcids
2.Els lípids
La bioquímica permet estudiar la composició i les propietats de les molècules orgàniques.
Els glúcids i els lípids són presents a totes les cèl·lules i en són les principals molècules energètiques. A diferència de les proteïnes i dels àcids nucleics, que són biomolècules específiques, els glúcids i els lípids tenen una arquitectura similar en tots els organismes. Les seves funcions estructurals també són fonamentals: les membranes cel·lulars són formades per bicapes de lípids i la paret cel·lular de la cèl·lula vegetal és constituïda per cel·lulosa, la biomolècula més abundant de la biosfera. Els lípids i els glúcids són fonamentals en la dieta dels animals.
La vida sembla dependre d’un comportament de la matèria regit per lleis i basat no pas en la tendència que va de l’ordre al desordre, sinó en la conservació d’un ordre preexistent.
E
RWIN SCHRÖDINGER, Què és la vida? (1944)
Els glúcids són biomolècules orgàniques constituïdes per carboni (C), hidrogen (H) i oxigen (O), amb la presència, a vegades, de nitrogen (N), sofre (S) i fòsfor (P). El nom glúcid (del grec glyk´ys, que significa ‘dolç’) fa referència al fet que algunes d’aquestes molècules, per exemple la glucosa o la sacarosa, tenen un gust dolç.
Els glúcids també s’anomenen hidrats de carboni o carbohidrats, encara que aquestes denominacions no són del tot correctes, perquè no es tracta de combinacions d’àtoms de carboni amb aigua.
Químicament, els glúcids són polihidroxialdehids o polihidroxicetones; és a dir, polialcohols en els quals un dels grups hidroxil ha estat substituït per un grup aldehid (–CHO) o per un grup cetona (–CO–). Els polímers i els derivats d’aquests particulars polialcohols també són glúcids. Els glúcids formen la major part de la matèria orgànica de la biosfera i constitueixen el principal component de la dieta dels animals. La glucosa és la molècula que s’origina durant la fotosíntesi.
• Monosacàrids o oses (sucres senzills)
No es poden hidrolitzar en altres glúcids i tenen de tres a vuit àtoms de carboni. Són monosacàrids: la ribosa (i el seu derivat, la desoxiribosa), la glucosa, la galactosa i la fructosa.
• Oligosacàrids
Formats per la unió de poques molècules de monosacàrids (de dos a deu): disacàrids (unió de dos monosacàrids –sacarosa, lactosa i maltosa–), trisacàrids (unió de tres monosacàrids), etcètera.
• Polisacàrids
Formats per la unió de moltes molècules de monosacàrids.
– Homopolisacàrids: formats per un sol tipus de monosacàrid.
– Pentosanes: polímers de pentoses (arabana i xilana).
– Hexosanes: polímers d’hexoses (midó, glicogen, dextrans, cel·lulosa, quitina).
– Heteropolisacàrids: formats per més d’un tipus de monosacàrid (pectina, hemicel·lulosa, agar-agar, goma aràbiga, àcid hialurònic, condroïtina…).
• Heteròsids
Formats per monosacàrids i altres molècules no glucídiques (aglicona), les quals poden ser els lípids (glucolípids), les proteïnes (glucoproteïnes), les bases nitrogenades, etc.
D-gliceraldehid
Els glúcids es troben a totes les cèl·lules, i entre les seves funcions biològiques en destaquen les següents:
a)Són la principal font energètica d’utilització immediata de les cèl·lules. Un gram de glúcid produeix 4,1kcal. La glucosa és la substància per mitjà de la qual la majoria dels organismes obtenen l’energia per al seu funcionament. Dos polímers de la glucosa, el midó en les plantes i el glicogen en els animals, són materials de reserva que poden ser hidrolitzats amb facilitat per originar glucosa.
b)Són elements estructurals de molts organismes. Per exemple, la cel·lulosa és el component principal de la paret cel·lular de les cèl·lules vegetals i el constituent principal de la fusta; la quitina forma part de l’esquelet extern de molts artròpodes; la condroïtina es troba en el teixit cartilaginós dels animals, etc.
c)Alguns glúcids són constituents d’altres biomolècules, com ara els àcids nucleics, que contenen ribosa o desoxiribosa; els fosfats d’adenosina (ATP i ADP), que contenen ribosa; les glucoproteïnes, que són presents a les membranes cel·lulars; els glucolípids, etc.
Els monosacàrids són els glúcids més senzills. La seva fórmula general és (CH2O)n, i el valor de n ha d’estar comprès entre 3 i 8. Són substàncies sòlides, blanques, solubles en aigua, sovint amb gust dolç i amb caràcter reductor. S’anomenen afegint la terminació -osa al prefix que indica el nombre d’àtoms de carboni: trioses, tetroses, pentoses, hexoses, etc. Cadascun d’aquests grups inclou dues sèries: les aldoses, amb un grup aldehid, i les cetoses, amb un grup cetona.
L-gliceraldehid
La cetosa més simple és la dihidroxiacetona, l’única cetotriosa existent. L’aldosa més simple és el gliceraldehid, el qual té el carboni 2 asimètric perquè apareix unit a quatre grups diferents. Tenint en compte la posició del grup hidroxil (–OH) en aquest carboni, es distingeixen dos isòmers espacials, o estereoisòmers, del gliceraldehid: el D-gliceraldehid,amb el grup hidroxil a la dreta en la representació plana, i l’L-gliceraldehid, amb l’esmentat grup localitzat a l’esquerra. Tots dos isòmers presenten quiralitat perquè són com imatges especulars i no es poden fer coincidir mitjançant girs. S’anomenen estructures enantiomorfes.
Les tetroses presenten 2 àtoms de carboni asimètrics, les pentoses en presenten 3, etc. El nombre possible d’isòmers és de 2x , on x representa el nombre d’àtoms asimètrics. Per a les formes D i L, es prenen com a referència les formes D i L del gliceraldehid segons la posició del grup –OH del carboni asimètric més allunyat del grup aldehid o cetona.
D-ribosa (aldopentosa)
C5H10O5
2-desoxi-D-ribosa (derivat de la ribosa)
C5H10O4
D-xilosa (aldopentosa)
C5H10O5
D-glucosa (aldohexosa)
C6H12O6
D-mannosa (aldohexosa)
C6H12O6
D-galactosa (aldohexosa)
C6H12O6
La presència de carbonis asimètrics determina que les molècules dels monosacàrids presentin activitat òptica, és a dir, desviïn el pla de vibració de la llum polaritzada que els travessa. Si el desvien cap a la dreta (en el sentit de gir de les busques del rellotge), s’anomenen formes dextrogires i es representen amb el signe (+), mentre que si el desvien en sentit contrari, s’anomenen formes levogires i es representen amb el signe (–). Cal remarcar que no hi ha cap relació entre els isòmers D i L d’una molècula i el fet que aquesta molècula sigui dextrogira o levogira.
Entre les pentoses destaquen la D-ribosa, component de l’àcid ribonucleic; la desoxi-D-ribosa (de fet, un derivat de l’anterior), component de l’àcid desoxiribonucleic; la D-xilosa i la D-arabinosa
Entre les hexoses, que són els monosacàrids més abundants, destaquen la D-glucosa, la D-mannosa i la D-galactosa, totes tres aldohexoses, i la D-fructosa, que és la cetohexosa més abundant.
D-arabinosa (aldopentosa)
C5H10O5 HO
D-fructosa (cetohexosa)
C6H12O6
Pentoses i hexoses més interessants biològicament.
La fórmula de la D-glucosa mostra que els àtoms de carboni d’un monosacàrid es numeren començant per l’extrem del grup aldehid, en el cas de les aldoses, o pel més proper al grup cetona, en el cas de les cetoses.
aldo-
Els noms de les diferents classes de monosacàrids, acabats sempre en -osa, es formen combinant el prefix aldo- o ceto-, segons que tinguin grup aldehid o cetona, amb l’infix que fa referència al nombre d’àtoms de carboni (-tri-, -tetr-, -pent-…).
La D-glucosa és el monosacàrid que més abunda en la natura. És anomenada sucre del raïm perquè aquesta fruita en conté molta. La glucosa s’origina durant la fotosíntesi i és el substrat de la respiració aeròbica dels organismes.
En els vegetals, la glucosa es troba en molts fruits i de diverses maneres: aïllada; formant disacàrids, com ara la sacarosa, o formant polisacàrids, com ara el midó, la cel·lulosa, etc.
Pel que fa als animals, la glucosa és el glúcid essencial en la seva alimentació i els proporciona bona part de l’energia que necessiten. Es recomana que entre el 50% i el 60% de l’energia que necessita el cos humà procedeixi dels glúcids. La glucosa es troba en forma de glicogen, el qual s’acumula al fetge i als músculs, i és un component de la sang dels animals superiors.
La glucosa s’obté industrialment per hidròlisi del midó. Es fa servir en la indústria alimentària, en pastisseria, en medicina (per obtenir solucions parenterals que serveixen per alimentar malalts que no poden ingerir productes per via oral), en el procés industrial de la fermentació alcohòlica, etc.
Algunes substàncies derivades dels monosacàrids (per reducció, oxidació o addició de grups funcionals) tenen interès biològic. Entre aquestes substàncies podem esmentar els glucoalcohols (sorbitol, mannitol i inositol), els desoxisucres (la desoxiribosa), els glucoàcids (àcids urònics, com ara l’àcid glucurònic, derivat de la glucosa, i l’àcid ascòrbic o vitamina C), els aminosucres (glucosamina i galactosamina) i els èsters fosfòrics.
estructures cícliques dels monosacàrids i la seva representació
Fins ara hem representat els monosacàrids mitjançant fórmules lineals obertes. No obstant això, s’ha comprovat que les dissolucions aquoses de monosacàrids de cinc o més àtoms de carboni presenten una activitat òptica diferent de la que els correspondria per les molècules originàries. Aquest procés s’anomena mutarotació i és degut al fet que, quan es dissol el monosacàrid, es produeix una reordenació molecular entre el grup carbonil (aldehid i cetona) i un dels grups hidroxílics (el del carboni 5 en el cas de les hexoses). S’origina, així, un pont d’oxigen intramolecular anomenat enllaç hemiacetàlic i es formen anells plans pentagonals o hexagonals, anomenats, respectivament, furanoses (es pren com a referència l’hidrocarbur furà) i piranoses (es pren com a referència l’hidrocarbur pirà).
En l’estructura cíclica, el carboni carbonílic, anomenat carboni anomèric, és asimètric i dóna lloc a dues estructures diferents, anomenades anòmers, que es designen amb les lletres α i β. L’anòmer α té el grup hidroxílic del carboni anomèric sota el pla de l’anell, mentre que l’isòmer β el té sobre el pla de l’anell.
Malgrat que les estructures cícliques, en el cas de les piranoses, es representin planes, la seva configuració real és plegada i adopten dues conformacions: la cis,o de nau, i la trans,o de cadira.
Les conformacions cícliques de les pentoses i les hexoses determinen algunes de les seves propietats biològiques i condicionen les maneres d’enllaçarse per formar disacàrids i polisacàrids.
1.4. L’enllaç O-glucosídic
β-D-glucopiranosa: estructura de nau
Els oligosacàrids i els polisacàrids s’originen per unió de monosacàrids mitjançant l’enllaç O-glucosídic, el qual es forma per reacció entre el grup –OH del carboni carbonílic d’un monosacàrid i un grup –OH d’un segon monosacàrid.
α-D-glucopiranosa: estructura de cadira
Aquests enllaços es descriuen indicant el tipus d’isòmer que enllacen (α o β) i els nombres dels àtoms de carboni portadors dels grups hidroxílics que reaccionen.
L’enllaç glucosídic s’anomena α o β, segons que el primer monosacàrid sigui α o sigui β
Glucoalcohols
Sorbitol (derivat de la glucosa) Mannitol (derivat de la mannosa)
Àcid-D-glucurònic
Àcid-D-galacturònic
Mio-inositol (l’isòmer més freqüent de l’inositol)
Desoxisucres
Aminosucres
Èsters fosfòrics
Àcid α-D-glucosa-1-fosfòric Àcid α-D-glucosa-6-fosfòric Àcid β-D-glucosa-1,6-difosfòric Àcid α-D-fructosa-6-fosfòric
Els oligosacàrids són els glúcids formats per cadenes de monosacàrids (de dos a deu) units per enllaços glucosídics. Els més abundants i els més importants pel que fa a la biologia són els disacàrids, com ara la maltosa –dues glucoses unides per enllaç α (1 → 4)–, la cel·lobiosa –dues glucoses unides per enllaç β (1 → 4)–, la lactosa –una galactosa i una glucosa unides per enllaç β (1 → 4)– i la sacarosa (glucosa i fructosa).
La maltosa es troba en el gra d’ordi germinat i es fa servir en l’obtenció de cervesa. També s’obté per hidròlisi del midó i es fa servir com a nutrient, edulcorant i medi de cultiu.
La cel·lobiosa no es troba lliure en la natura, però és la unitat disacàrida que constitueix la cel·lulosa.
La lactosa, o sucre de la llet, és el principal glúcid de la llet dels mamífers.
La sacarosa, o sucre de canya, és, juntament amb el midó, el principal glúcid de reserva dels vegetals. En nombroses famílies de plantes se sintetitza en la fotosíntesi. És el glúcid més edulcorant i s’obté de la canya de sucre i de la remolatxa sucrera.
La sacarosa és formada per la unió d’una α–glucosa i una β–fructosa, unides precisament pel carboni 1 de la primera i el carboni 2 de la segona. És per aquest motiu que, a diferència d’altres sucres, la molècula de sacarosa no té caràcter reductor i dóna negatiu en la prova de Fehling, que s’utilitza en el laboratori per a la identificació dels sucres.
La sacarosa, la lactosa i la maltosa són una font important d’energia per a molts organismes. El catabolisme d’aquests disacàrids inclou la hidròlisi en els seus monosacàrids constituents (glucosa, galactosa i fructosa). En l’espècie humana, aquesta hidròlisi la porten a terme els enzims sacarasa, lactasa i maltasa, que són produïts en les cèl·lules digestives.
Hi ha pocs oligosacàrids que siguin formats per més de dos monosacàrids i que siguin tan importants des del punt de vista de la biologia com els disacàrids. Un d’aquests oligosacàrids digne de ser esmentat és un trisacàrid, la trealosa, formada per la unió de tres glucoses i freqüent en molts bolets.
Un edulcorant és qualsevol substància que serveix per endolcir o donar gust dolç, un dels quatre sabors bàsics i amb una importància capital en la conducta alimentària humana. Els edulcorants naturals més emprats són els sucres, és a dir, els monosacàrids i els disacàrids.
El sucre bàsic és la sacarosa,o sucre de taula, i la seva capacitat per endolcir es pren com a referència i es considera igual a 1. Per comparació, el poder edulcorant de la lactosa és 0,25; el de la galactosa, 0,3; el de la maltosa, 0,6; el de la glucosa, 0,7; i el de la fructosa, entre 1,1 i 1,3. A més d’edulcorar, els glúcids aporten molta energia, si bé tenen tots el mateix valor energètic: 16,7 j·g -1 .
La mel és un edulcorant natural produït per les abelles a partir del nèctar de les flors. Gràcies a l’enzim invertasa, l’abella de la mel transforma bona part de la sacarosa del nèctar en mescles de fructosa i glucosa que, juntament amb matèries minerals com ara gomes, dextrines, àcids, aminoàcids, aigua, etc., s’afegeixen als altres sucres presents a la mel. La presència de totes aquestes substàncies fa que, a més d’energètica –uns 12,3 j·g -1 de mitjana–, la mel sigui un aliment molt més complet que el sucre. El poder edulcorant de la mel, superior al de la sacarosa, depèn del contingut relatiu en fructosa/glucosa, que varia entre 1 i 1,6 segons el seu origen vegetal.
Darrerament, la preocupació per mantenir-se en forma i amb bona salut ha fet augmentar molt el consum de productes baixos en calories, anomenats lleugers o light. L’any 2007 aquests productes representaven un 30% de les vendes del mercat alimentari de l’Europa occidental.
De forma genèrica, es pot dir que un producte lleuger és el que té menys greixos (especialment els saturats) i menys sucres. Els greixos a vegades són substituïts per glúcids, que són menys energètics, i el sucre, si es tracta d’un producte que ha de ser dolç, és substituït per un altre edulcorant.
En principi hi ha –com a mínim– tres alternatives, deixant de banda els moderns neosucres o fructooligosacàrids. La primera alternativa és substituir la glucosa per un altre sucre més dolç: la fructosa. Però no hi ha gaire diferència i el producte continua sent força energètic (malgrat allò que insinua la publicitat d’algun d’aquests productes). Tanmateix, a vegades s’empra la fructosa no tant perquè el producte sigui més light, sinó perquè és més indicat per als diabètics, ja que la fructosa no té una acció tan directament hiperglucemiant com ara la glucosa.
Una segona alternativa és la dels glucoalcohols (sorbitol, mannitol, etc.), que tenen un poder edulcorant de l’ordre de 0,5-0,6. Els glucoalcohols no s’usen gaire en l’alimentació perquè presenten mala absorció intestinal i sovint causen diarrees, tot i que alguns productes dietètics en contenen, però sí que es fan servir molt en els xiclets sense sucre, ja que com que els bacteris de la boca no els poden atacar no contribueixen, com el sucre, a la càries dental.
La tercera possibilitat és la dels edulcorants intensos,formats per molècules amb un sabor dolç molt fort que fins i tot pot resultar desagradable. L’avantatge d’aquests edulcorants és que s’utilitzen en dosis molt petites i, per tant, no són
significativament energètics. El primer edulcorant intens que es va sintetitzar, i el més conegut, és la sacarina, que va ser sintetitzada per Remsen i Fahlberg l’any 1879 a partir del toluè i té un poder edulcorant d’entre 300 i 400. Més recentment s’han sintetizat substàncies amb capacitats edulcorants sorprenents: ciclamats (poder edulcorant entre 25 i 30), aspartam i acesulfam (poder edulcorant entre 100 i 200), alitam (poder edulcorant de 2000), dulcina (poder edulcorant de 800), etc. També s’han obtingut edulcorants intensos d’origen vegetal, com ara la taumatina i la monelina (un glucopèptid i una proteïna, respectivament) o la dihidrocalcona, amb un poder edulcorant entre 1500 i 3000. Algunes d’aquestes substàncies s’usen a bastament, mentre que d’altres no estan autoritzades, ja que no se sap quins efectes poden tenir sobre la salut. Una altra propietat d’aquestes substàncies que s’estudia activament és com poden interferir en els mecanismes reguladors de la gana i la sensació de sacietat.
1.6. Els polisacàrids
Els polisacàrids són glúcids compostos per molts monosacàrids (de vegades, uns quants milers), o pels seus derivats, units mitjançant enllaços O-glucosídics que formen llargues cadenes lineals o ramificades. Es tracta de substàncies de pes molecular elevat, la majoria insolubles en aigua i sense caràcter reductor, que formen amb facilitat dispersions col·loïdals. Segons la seva funció, es divideixen en polisacàrids de reserva, com ara el midó i el glicogen, i estructurals o de sosteniment, com ara la cel·lulosa i la quitina. Els primers proporcionen l’energia per al metabolisme cel·lular i s’acumulen en el citoplasma en forma de grànuls, mentre que els segons fan d’element estructural extracel·lular.
El midó, principal glúcid de reserva dels vegetals, és el producte final de la fotosíntesi; es troba en els cloroplasts i s’acumula en els amiloplasts. És format per glucoses que constitueixen, de fet, dos polímers diferents: l’amilosa i l’amilopectina. La primera és forma-
La presència de les estructures AH i B en la mateixa molècula és una condició necessària, encara que no suficient, perquè existeixi el gust dolç.
RECORDA
Segons la seva funció, els polisacàrids es divideixen en polisacàrids de reserva (midó, glicogen, etc.) i polisacàrids estructurals (cel·lulosa, quitina, etc.).
= glucosa
Representació gràfica de l’estructura del glicogen. Les glucoses estan unides per enllaços α (1 → 4). En els punts de ramificació, l’enllaç és α (1 → 6).
da per cadenes lineals de glucosa, no ramificades, unides per enllaços α (1 → 4). L’amilopectina és formada per les mateixes cadenes, però presenta ramificacions (d’unes dotze unitats glucosa de longitud) a partir d’enllaços α (1 → 6) cada dotze unitats glucosa aproximadament. Es troba en les llavors (cereals), en els tubercles (patata) i en les arrels. És molt important en l’alimentació humana i es consumeix en forma de farines de cereals, d’arròs, de patates, etc. En la indústria es fa servir per obtenir-ne glucosa i dextrines, i presenta nombroses aplicacions en l’àmbit farmacèutic, en el tèxtil, etc.
El glicogen és el principal polisacàrid de reserva en els teixits animals i abunda especialment en les cèl·lules del fetge i dels músculs. És format per llargues cadenes de molècules de glucosa, amb nombroses ramificacions. La seva estructura és comparable a l’estructura de l’amilopectina, però les cadenes laterals són més curtes (8 o 10 restes glucosa) i més abundants (cada 8 o 10 unitats glucosa). Per hidròlisi origina glucosa.
La cel·lulosa és el polisacàrid més abundant de la biosfera i és el component bàsic de la paret cel·lular de les cèl·lules vegetals. És formada per llargues cadenes, sense ramificar, de glucoses unides per enllaços β (1 → 4). Aquestes cadenes, unides per enllaços d’hidrogen, es disposen en paral·lel formant feixos. La fusta, per exemple, és formada per més d’un 50% de cel·lulosa, i en algunes plantes, com ara el cotó, aquest percentatge pot arribar a prop del 100%. La cel·lulosa és un producte d’una gran importància industrial i constitueix, per exemple, la matèria primera de la indústria paperera.
Fracció amilosa i amilopectina del midó.
L’estructura del glicogen és similar a la de l’amilopectina. En color, un punt de ramificació: enllaç α (1 → 6).
La quitina és un polisacàrid format per molècules de glucosamina, un derivat monosacàrid del grup dels aminosucres. Aquestes glucosamines estan acetilades i unides per enllaços β (1 → 4). Forma part de l’exosquelet dels diversos grups d’artròpodes (aràcnids, insectes, crustacis i miriàpodes) i de la paret cel·lular d’alguns grups de fongs.
1.7. Els heteropolisacàrids
Els heteropolisacàrids –com la pectina, l’hemicel·lulosa, l’agar-agar, la goma aràbiga, l’àcid hialurònic, la condroïtina i l’heparina– són polisacàrids formats per més d’un tipus de monosacàrid. La pectina, que conté àcids D-galacturònics, es troba a la paret vegetal, entre les fibres de cel·lulosa. Abundant a les fruites, per cocció absorbeix gran quantitat d’aigua i dóna la consistència característica de les melmelades i gelees; un origen i unes propietats similars té l’hemicel·lulosa,que és un polímer de D-xiloses. L’agar-agar, que conté D- i L-galactoses, és present a les membranes de les algues vermelles, d’on s’obté. S’usa tradicionalment a la cuina i a la medicina xineses i serveix, en forma de gel, com a suport per als cultius de microorganismes en el laboratori.
L’àcid hialurònic –que és compost d’àcid D-glucurònic i N-acetilglucosamina– és el component principal de la substància intercel·lular dels teixits connectius, mentre que la condroïtina –polímer de l’àcid D-glucurònic i N-acetil-galactosamina– ho és del teixit cartilaginós. L’heparina, d’estructura similar, és un anticoagulant present en els teixits orgànics. Aquestes tres darreres substàncies són mucopolisacàrids, dits així pel seu caràcter llefiscós, és a dir, per la seva gran viscositat i capacitat de retenir aigua.
Són polímers complexos que per hidròlisi originen monosacàrids (o els seus derivats) i altres molècules no glucídiques, anomenades aglicons. Els més importants són els glucolípids, en els quals l’aglicó és un lípid, i els glucopròtids, que presenten com a aglicó un pèptid o una proteïna. Entre els glucopròtids, destaquen les glucoproteïnes (mucoproteïnes, immunoglobulines, algunes hormones, etc.). Per la seva banda, els denominats peptidoglicans són constituents estructurals de la paret cel·lular dels procariotes (bacteris) i són formats per llargues cadenes de polisacàrids (polímers dels aminoglúcids N-acetilD-glucosamina i l’àcid N-acetil-muràmic) travades per polipèptids curts. El més abundant és la mureïna
Cultius bacterians sobre un suport d’agar-agar en càpsula de Petri.
Fragment d’una molècula de cel·lulosa (cadena lineal de D-glucoses unides per enllaços β (1 → 4).
Fragment d’una molècula de quitina. En color, hi ha destacada la unitat disacàrida que es repeteix.
La glucèmia –o concentració de glucosa a la sang– té uns valors fisiològics que oscil·len entre 0,6 g/l i 1,1 g/l, gràcies a l’acció combinada de molts factors reguladors. Entre aquests factors hi ha dues hormones: la insulina, que fa baixar els valors de glucèmia, i el glucagó, que els fa pujar.
La regulació hormonal del contingut de glucosa a la sang
La glucosa és un dels components del plasma sanguini. La concentració d’aquest monosacàrid a la sang, que s’anomena glucèmia, en condicions normals oscil·la entre 0,6 g/l, després del dejuni nocturn, i 1,1 g/l, després dels àpats.
La regulació de la glucèmia és controlada principalment per l’acció nerviosa i per la insulina i el glucagó, dues hormones que tenen funcions antagòniques i que són segregades pel pàncrees.
La insulina és una hormona hipoglucemiant, és a dir, provoca una disminució del contingut de glucosa a la sang. Això afavoreix l’entrada d’aquest monosacàrid a les cèl·lules hepàtiques, musculars i adiposes. Al mateix temps, la insulina activa la síntesi de glicogen en el fetge. La deficient síntesi d’insulina per part del pàncrees origina una malaltia metabòlica força freqüent, la diabetis.
El glucagó, en canvi, és el principal agent hiperglucemiant: estimula la hidròlisi del glicogen en el fetge, cosa que fa augmentar el contingut de glucosa a la sang.
La cel·lulosa o fibra vegetal
La paret vegetal de les cèl·lules vegetals, que a la fotografia està tenyida de verd, és constituïda principalment de cel·lulosa.
Si bé la cel·lulosa és molt abundant en l’alimentació de la majoria dels animals, no els aporta cap tipus de nutrient, ja que aquests animals no disposen ni dels enzims ni dels bacteris que permeten digerir aquest polisacàrid i obtenir-ne glúcids més senzills, com ara la glucosa. En canvi, les larves de certs insectes (xilòfags) mengen fusta i poden digerir la cel·lulosa, i en el tub digestiu dels animals remugants, com ara les vaques, existeix un òrgan especial amb grans quantitats de bacteris que digereixen la cel·lulosa.
En l’ésser humà, la cel·lulosa de les verdures, les fruites, els llegums, la fruita seca, etcètera és pràcticament indigerible i no aporta ni energia ni nutrients estructurals. No obstant això, la ingestió de cel·lulosa o de fibra vegetal és molt beneficiosa per al bon funcionament del tub digestiu, ja que afavoreix l’absorció dels aliments, l’eliminació de substàncies nocives i la defecació.
7.1. Enumera les principals funcions dels glúcids i explica-les breument amb exemples concrets. Explica també l’etimologia del terme glúcid, digues quines altres denominacions reben aquests principis immediats i raona, a més, si són correctes.
7.2. Quins són els tres elements químics més abundants en els glúcids? Quins són els tres principals grups funcionals dels glúcids? Escriu-ne la fórmula.
7.3. Explica els criteris que es fan servir per anomenar químicament els monosacàrids. Escriu la fórmula química general d’aquest grup de glúcids. Quina és la diferència química entre les aldoses i les cetoses?
7.4. La fórmula empírica C6 H12 O6 representa alguns monosacàrids molt abundants. Indica’n els noms i escriu-ne les fórmules lineals. Quin grup funcional diferencia els dos monosacàrids?
7.5. Quins monosacàrids són components de l’ADN, l’ARN i l’ATP?
7.6. La cel·lulosa és el glúcid més abundant en la biosfera. Digues on es troba, quina funció biològica desenvolupa i quin monosacàrid el forma. Explica alguna aplicació d’aquest polisacàrid. Descriu breument el valor nutritiu de la cel·lulosa en els animals herbívors i en l’ésser humà.
7.7. Copia la taula següent i completa-la escrivint, per a cada glúcid, a quin grup pertany (i a quin subgrup, si cal), on es troba i quina funció té.
La remolatxa sucrera és emprada per a l’extracció de sacarosa o sucre de canya, que comunament és el glúcid que més s’utilitza com a edulcorant.
Quitina
Ribosa
Lactosa
Galactosa
Glicogen
Condroïtina
Glucolípid
Sacarosa
Cel·lulosa
Fructosa
7.8. Copia aquest text i completa’n els espais buits amb les paraules següents: glicogen, dieta, carbohidrats, fotosíntesi, enllaç glucosídic, lactosa, polialcohols, biosfera, aldehid, reserva, hidròlisi, cel·lulosa, midó, organismes, monosacàrids, quitina, glucosa, polisacàrids, sosteniment
Els glúcids són … en els quals un dels grups hidroxil ha estat substituït per un grup … o per un grup cetona. També es coneixen amb el nom de … . Constitueixen la major part de la matèria orgànica de la … i són els principals components de la … dels animals.
La … és el component fonamental de molts glúcids i la molècula que s’origina durant la … .
Els … són glúcids més senzills, mentre que els disacàrids i els … s’originen per unió, mitjançant un … … de dues o moltes molècules de monosacàrids.
En el grup dels disacàrids s’inclouen, entre altres, la …, principal glúcid de la llet, i la maltosa.
Els polisacàrids desenvolupen dues funcions biològiques, la de … energètica i l’estructural o de … . El … és el principal polisacàrid de reserva dels vegetals, mentre que en els animals aquesta funció la porta a terme el … . Per … total d’aquests dos polisacàrids s’origina glucosa, una substància per mitjà de la qual la majoria dels … obtenen l’energia que necessiten per al seu funcionament.
Entre els polisacàrids estructurals destaquen la …, principal component de la paret cel·lular de les cèl·lules vegetals, i la …, que forma l’esquelet extern dels crustacis, els insectes, els aràcnids, etc.
7.9. Explica les diferències que hi ha entre els homopolisacàrids i els heteropolisacàrids i posa exemples de glúcids per a cada un d’aquests dos grups. Digues què és un heteròsid i posa’n alguns exemples.
7.10. La glucosa és el monosacàrid més abundant. En el plasma sanguini humà cal que n’hi hagi una certa concentració. Defineix els termes glucèmia, hiperglucemiant i hipoglucemiant. Quin altre nom rep la glucosa i en quina fruita abunda? Explica a partir de quins disacàrids i polisacàrids es pot obtenir glucosa. Quin és el destí de l’excés de glucosa que s’ingereix durant els àpats?
7.11. Identifica amb precisió a quina substància correspon cadascuna de les tres fórmules que hi ha a l’esquerra. Indica-hi tots els carbonis asimètrics.
Els lípids (del grec lipos, que significa ‘greix’) també són anomenats greixos. Es tracta de biomolècules formades per carboni (C), hidrogen (H) i oxigen (O), les quals sovint contenen fòsfor (P), nitrogen (N) i sofre (S). Solen tenir un pes molecular elevat i són insolubles en aigua i solubles en dissolvents orgànics. Químicament, molts lípids contenen àcids orgànics enllaçats a compostos amb grups d’alcohol. També poden contenir àcid fosfòric, àcid sulfúric, bases nitrogenades i glúcids.
A diferència d’altres principis immediats, els lípids constitueixen un grup químicament molt heterogeni. De fet, gairebé només tenen en comú el fet de ser insolubles en aigua (i altres dissolvents polars) i solubles, en canvi, en dissolvents orgànics (és a dir, no polars) com ara el benzè, el cloroform, l’èter, l’octà, etc. Els lípids que contenen àcids grassos, anomenats saponificables, n’alliberen les sals (sabó) per hidròlisi alcalina, cosa que no fan els lípids que no contenen àcids grassos, anomenats insaponificables
Els lípids es troben en totes les cèl·lules, en les quals desenvolupen, bàsicament, tres funcions molt importants:
a)La funció de reserva energètica. Els lípids són els principals materials de reserva energètica dels animals. Un gram de lípid pot produir 9,4 kcal. Els lípids de reserva energètica s’acumulen principalment en el teixit adipós de la pell de molts animals i en les llavors d’alguns vegetals.
b)La funció estructural. Certs lípids, principalment els fosfolípids i el colesterol, són components essencials de la membrana cel·lular, en la qual formen la bicapa lipídica. Aquesta bicapa n’és el principal element estructural i és també responsable de la permeabilitat selectiva de la membrana. Alguns lípids donen consistència i protecció a òrgans vegetals i animals. Així, les ceres impermeabilitzen les fulles, els fruits, la pell, els pèls, les plomes, etc. Els lípids del teixit adipós de la pell de certs animals homeoterms actuen com a aïllant tèrmic, sobretot en els de clima fred, com ara la balena, la foca, el lleó marí, etc.
Teixit adipós
El teixit adipós és un tipus especial de teixit conjuntiu en què predominen les cèl·lules adiposes (adipòcits o cèl·lules grasses), caracteritzades pel seu alt contingut en lípids (principalment triglicèrids).
Hi ha dos tipus de teixit adipós, que es diferencien pel color: el teixit adipós blanc i el teixit adipós bru.
El teixit adipós blanc, format per adipòcits amb una sola gran gota de greix en el citoplasma, emmagatzema triglicèrids per enviar-los als altres teixits, que els fan servir com a font d’energia i per formar ATP en períodes interdigestius o de desdejuni.
El teixit adipós bru té adipòcits amb nombroses gotetes lipídiques en el citoplasma, presenta una gran activitat metabòlica i oxidativa i els seus lípids es consumeixen in situ per generar calor. Té un paper important en la regulació de la temperatura corporal, per exemple en els nounats.
• Lípids saponificables (contenen àcids grassos i amb els àlcalis originen sabons):
– acilglicèrids, ceres, fosfoglicèrids, esfingolípids i glucolípids.
• Lípids insaponificables (no contenen àcids grassos i amb els àlcalis no originen sabons): – esteroides, terpens o isoprenoides, prostaglandines.
RECORDA
Els àcids grassos escassegen en forma lliure. Tanmateix, tot i que es trobin en petites quantitats, determinen les propietats d’alguns aliments, com ara el gust. Així, l’acidesa de l’oli ve donada per la proporció d’àcids grassos lliures que conté (expressada en tant per cent).
c)La funció reguladora. Algunes substàncies que intervenen en nombrosos processos fisiològics són lípids o derivats d’aquests, com ara les vitamines liposolubles (vitamines A, D, E i K), les hormones esteroïdals (hormones sexuals i hormones segregades per les glàndules suprarenals) i les prostaglandines.
Els lípids, substàncies molt utilitzades per l’ésser humà, es poden extreure de nombroses espècies vegetals (olivera, gira-sol, soja, etc.) i animals (porc, peixos, balena, etc.). Una part de la producció de greixos es destina a l’alimentació humana i del bestiar (olis, farines de peix, etc.), i una altra part a diferents usos industrials, com ara la fabricació de sabons, detergents, cosmètics, medicaments, pintures, vernissos, emulsionants, lubrificants, additius alimentaris, etc.
Estructura esquemàtica i fórmula de l’àcid esteàric.
Cadena hidrocarbonada Grup hidròfob Grup carboxílic Grup hidròfil CH3—(CH2)16—COOH Àcid esteàric
Els àcids grassos són els components fonamentals de molts lípids. Cada molècula d’àcid gras és formada per una cadena d’àtoms de carboni (cadena hidrocarbonada) amb els enllaços lliures saturats per àtoms d’hidrogen i un grup àcid o carboxílic en un extrem. Aquesta molècula es diu que és amfipàtica (conté grups amb propietats diferents), ja que el grup àcid és hidròfil (és polar i té afinitat amb l’aigua), mentre que la cadena hidrocarbonada és hidròfoba (és apolar i repel·leix l’aigua) i lipòfila (té afinitat amb els lípids). A causa d’aquesta característica química, en presència de l’aigua, les molècules dels àcids grassos tendeixen a orientar-se espontàniament: els extrems hidròfils entren en contacte amb l’aigua i els hidròfobs tendeixen a repel·lir-la. Es coneixen dos tipus d’àcids grassos: els saturats, amb tots els àtoms de carboni units per enllaços simples, i els insaturats, en els quals dos àtoms contigus de carboni continguts en la cadena hidrocarbonada han perdut un àtom d’hidrogen i es troben units per un doble enllaç (poliinsaturats quan tenen més d’un doble enllaç). Els àcids grassos monoinsaturats són els que presenten un únic doble enllaç, mentre que els poliinsaturats en presenten dos o més. L’ésser humà, com els altres mamífers, sintetitza la major part dels àcids grassos. Però n’hi ha tres –el linoleic, el linolènic i l’araquidònic– que no es poden sintetitzar i que cal ingerir mitjançant la dieta. S’anomenen àcids grassos essencials
CH3—(CH2)16 COOH
Com menys dobles enllaços té i més llarga és la seva cadena molecular més alt és el punt de fusió d’un àcid gras (vegeu la taula de la pàgina següent); aquest fet pràctic condiciona la consistència física de les mescles que els contenen.
Nom comú Fórmula
Caproic
Caprílic
Càpric
Làuric
Mirístic
Palmític
Esteàric
CH3–(CH2)4–COOH
CH3–(CH2)6–COOH
CH3–(CH2)8–COOH
CH3–(CH2)10–COOH
Greixos on es troba Punt de fusió (°C)
Araquídic
CH3–(CH2)12–COOH
CH3–(CH2)14–COOH
CH3–(CH2)16–COOH
Palmitoleic
CH3–(CH2)18–COOH
Àcids saturats
Greixos de la llet.
Greixos de palmes i de la llet.
Greixos de palmes i de la llet, esperma de balena.
Greixos de palmes i de lauràcies. Especialment abundant en l’oli de coco.
Quantitats petites en molts greixos.
En nombrosos tipus de greixos. Molt abundant en l’oli de palma.
En nombrosos tipus de greixos, especialment en els de mamífers terrestres.
Greixos de les llavors de les lleguminoses.
Àcids insaturats
CH3–(CH2)5–CH=CH–(CH2)7–COOH
CH3–(CH2)7–CH=CH–(CH2)7–COOH
CH3–(CH2)4–CH=CH–CH2–CH= =CH(CH2)7–COOH
CH3–CH2–CH=CH–CH2–CH= =CH–CH2–CH=CH(CH2)7–COOH
CH3–(CH2)4–CH=CH–CH2–CH= =CH–CH2–C=CH–CH2–CH= =CH–(CH2)3–COOH
Petites quantitats en molts tipus de greixos. Abundant en els olis d’animals marins.
En tots els greixos. Abundant en l’oli d’oliva i d’ametlla.
En molts greixos. Abunda en l’oli de llinosa.
En olis assecants, com ara el de llinosa.
Quantitats petites en nombrosos greixos animals (del cervell, del fetge, etc.). Abunda en l’oli de sardina.
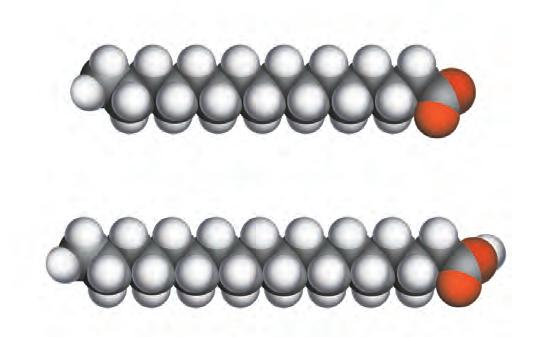
a) Models moleculars compactes dels àcids grassos palmític i esteàric.
b) Representació de molècules amfipàtiques.
Els àcids grassos són els principals components, esterificats amb la glicerina, dels greixos neutres o acilglicèrids
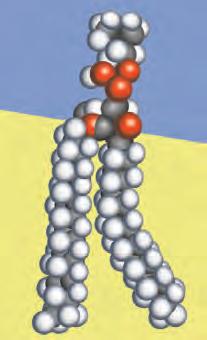
Les margarines
L’oli d’oliva és un producte molt utilitzat en la cuina mediterrània, però fora d’aquest àmbit geogràfic és molt poc difós, ja que el greix més utilitzat per cuinar és la mantega. L’any 1869 França estava en guerra amb Prússia, l’explotació de les vaques es restringia a usos militars al front, la mantega escassejava i la poca que hi havia era molt cara.
Per tal de posar remei a la falta d’aquest producte bàsic a les cuines parisenques, l’emperador Napoléo III va convocar un concurs «per tal d’obtenir un greix similar a la mantega, però de preu inferior, que es conservi molt de temps sense alterar-se i mantingui el seu valor nutritiu». El concurs el va guanyar el farmacèutic Mège-Mouriès, amb la margarina. Aquest producte es basa en l’augment del punt de fusió dels àcids grassos insaturats, ja que incorpora hidrogen en els seus dobles enllaços. Al principi, les margarines es feien amb greixos animals (sèus lleugers, oli de balena, etc.) emulsionats amb aigua o llet. En una segona etapa es van començar a usar els greixos vegetals fluids que, com hem vist, s’endureixen per hidrogenació. Actualment s’utilitzen olis vegetals (de cacauet, gira-sol, soja, colza, coco, palma…) i de peix.
Més que de margarina, cal parlar de margarines, perquè n’hi ha de composicions molt diverses (en l’etiqueta consta si són d’origen vegetal o no). Són constituïdes per una fase aquosa i una fase grassa heterogènia en la qual, gairebé sempre, a més de greixos vegetals (hidrogenats i no hidrogenats) hi ha altres greixos. Moltes de les margarines d’oli de gira-sol o de blat de moro, per exemple, no solen procedir de més d’un 75% d’aquests olis.
A més, les margarines solen contenir additius, com ara antioxidants, emulsionants (lecitina, per exemple), vitamines A, D i E, colorants autoritzats, ferments làctics que els donen una aroma agradable de llet i un revelador obligatori (midó) que permet distingir-les de la mantega, de la qual, altrament, serien molt difícils de diferenciar. Però són tan saludables, les margarines? Se sap que, malgrat no contenir colesterol, les margarines poden contribuir a elevar els nivells del colesterol LDL («dolent») en sang i rebaixar-ne els de colesterol HDL («bo»). En el procés d’hidrogenació dels greixos que formen la margarina s’origina un isòmer trans que és aliè a l’organisme, de manera que aquests greixos trans podrien interferir en el metabolisme de la cèl·lula.
Les cèl·lules del nostre organisme poden fabricar molts dels altres àcids grassos que necessitem a partir dels àcids grassos ingerits amb la dieta. Però no els poden sintetitzar tots, ja que, com pots veure en l’esquema de la dreta, només poden introduir canvis en alguns punts de la cadena dels àcids. Per tant, hi ha uns àcids grassos (l’àcid linoleic, l’àcid linolènic i l’àcid araquidònic), denominats àcids grassos essencials (EFA), que s’han d’introduir forçosament amb la dieta, ja que el nostre organisme no els pot sintetitzar. Els àcids grassos essencials també són indispensables per obtenir altres àcids grassos propers, generalment poliinsaturats i de cadena llarga. A més, els àcids grassos essencials també són precursors de les prostaglandines.
Cada cop s’utilitza més la fórmula convencional següent per designar els àcids grassos insaturats:
Ca: x (n – y)
Àcid esteàric C18 : 0 saturat
3C
Àcid oleic C18 : 1 (n – 9) monoinsaturat
3C
Els animals poden introduir un enllaç doble en aquest punt
Àcid linoleic C18 : 2 (n – 6) poliinsaturat COOH
3C
3C
Àcid α-linolènic C18 : 3 (n – 3) poliinsaturat COOH
Àcids grassos indispensables
on a = nombre d’àtoms de carboni; x = nombre de dobles enllaços; n = àtom de carboni que porta el metil terminal (CH3 ), i n – y = primer carboni implicat en el primer doble enllaç, a comptar des de l’extrem n. En l’esquema de dalt pots comprovar que la fórmula global de l’àcid linoleic és C18 : 2 (n – 6) i que la de l’àcid linolènic és C18 : 3 (n – 3). Els denominats àcids omega-6 (ω6) provenen de la família de l’àcid linoleic, mentre que els denominats àcids omega-3 (ω3) es consideren que deriven de l’àcid linolènic. Els àcids omega-3 i omega-6 presenten múltiples beneficis per a la salut. Els omega-3 redueixen els nivells de colesterol i triglicèrids a la sang i disminueixen el risc de malalties coronàries. Les principals fonts d’àcid linoleic són els olis vegetals, mentre que l’àcid linolènic abunda en alguns tipus de peix, sobretot en el peix blau (sardina, seitó, tonyina, verat…) i en els salmònids (truita i salmó).
Variació anual del contingut de greixos i aigua en la carn de la sardina
greix aigua
Glicerina
HC
HC OH
HC OH OH H H
Monoacilglicèrid
HC
HC O
HC OH OH CR1 O H H
Diacilglicèrid
HC
HC O
HC O OH CR1 O CR2 O H H
Triacilglicèrid
HC
HC O
HC O O CR1
Els acilglicèrids són uns lípids formats per àcids grassos i pel polialcohol glicerina (1,2,3-propantriol). Aquest últim consisteix en una cadena de tres àtoms de carboni, cada un dels quals té un grup hidroxil o alcohol. Segons el nombre de grups hidroxil (–OH) de la glicerina units per enllaços èster a molècules d’àcids grassos, els acilglicèrids es distingeixen en monoacilglicèrids, diacilglicèrids i triacilglicèrids. Aquests últims, també anomenats triglicèrids, són els més abundants i els més interessants pel que fa a la biologia, ja que són els principals components dels lípids de reserva de les cèl·lules animals i vegetals.
Els triglicèrids suren en l’aigua, ja que tenen una densitat inferior. Com la resta de greixos, es tracta de substàncies molt riques en energia, les quals es troben en forma de gotetes microscòpiques en la majoria de les cèl·lules. El que en el llenguatge corrent es designa amb el nom de greixos són, de fet, mescles d’origen natural de diversos triglicèrids. El contingut relatiu d’àcids grassos saturats i insaturats determina l’estat físic d’un greix.
Els olis són greixos líquids a temperatura ambient (uns 20 °C) pel fet de ser rics en àcids grassos insaturats. La mantega és un greix pastós a temperatura ambient, amb predomini d’àcids grassos saturats. Els sèus animals (de boví o oví, el llard o saïm de porc, etc.) són greixos sòlids a temperatura ambient, amb més predominiencara d’àcids grassos saturats. Així, per exemple, la triestearina és el component principal del sèu de bou.
Tots aquests greixos neutres contenen, a banda dels triacilglicèrids, petites quantitats d’àcids grassos lliures (que donen als olis l’acidesa característica) i altres compostos. Els greixos no són estables de forma indefinida, sinó que tendeixen a l’enranciment, un procés químic complex causat per l’oxidació i la fragmentació de les cadenes dels àcids grassos i per la formació d’aldehids, peròxids, cetones, etc. amb olors i sabors desagradables. La llum, l’oxigen, la calor i alguns metalls (Cu, Fe, Mn) afavoreixen aquest procés. Per contra, algunes substàncies antioxidants, com ara el tocoferol i els olis vegetals, el minimitzen.
La funció de reserva dels triglicèrids
Els triglicèrids ocupen gairebé tot el volum de la cèl·lula adiposa, o adipòcit. Aquestes cèl·lules són especialment abundants a sota de la pell, a la cavitat abdominal i a la zona de les glàndules mamàries. Les persones obeses tenen emmagatzemats en els adipòcits bastants quilograms de triglicèrids, suficients per proporcionar l’energia basal necessària per a l’activitat del cos durant uns quants mesos. D’altra banda, el cos sols pot acumular en forma de glicogen (el principal glúcid de reserva dels teixits animals) una quantitat inferiora la
que seria necessària per proporcionar l’energia d’un dia. Els triglicèrids, doncs, són molt més eficaços que el glicogen per desenvolupar la funció de reserva d’energia. No solament poden emmagatzemar-se en quantitats molt grans i en forma deshidratada, sinó que també produeixen més del doble d’energia que els glúcids en igualtat de pes.
En algunes cèl·lules animals, els triglicèrids emmagatzemats a sota de la pell desenvolupen també una important funció aïllant. Les foques, les morses, els pingüins i altres animals àrtics i antàrtics de sang calenta tenen un gruixut pannicle de triglicèrids que els protegeix de les baixes temperatures.
A. L. LEHNINGER, Principis de bioquímica
Esterificació, hidròlisi i saponificació
L’esterificació és una reacció química que es produeix entre una molècula amb un grup carboxílic (–COOH) i una altra molècula amb un grup hidroxil (–OH), les quals estableixen un enllaç mitjançant un pont d’oxigen. A conseqüència d’aquesta reacció, es forma un èster i s’allibera una molècula d’aigua.
Aquesta reacció és freqüent entre un àcid gras i algun dels grups hidroxils de la glicerina, i dóna lloc als acilglicèrids.
El sabó és una mescla de les sals (sòdiques o potàssiques) dels àcids grassos presents en els triglicèrids, a partir dels quals s’obté per hidròlisi alcalina.
Esterificació
La hidròlisi és la reacció contrària a l’esterificació i és catalitzada per uns enzims anomenats lipases. De fet, les lipases són uns enzims poc específics, perquè trenquen l’enllaç èster sense que importi entre quin àcid gras i quin alcohol s’ha format. Les lipases efectuen la digestió química dels greixos a l’intestí digestiu.
La saponificació és la reacció d’hidròlisi d’un èster en presència d’un àlcali, com ara l’hidròxid de sodi (NaOH) o l’hidròxid de potassi (KOH), amb formació d’alcohol i de sals d’àcids grassos, anomenades sabons
La fabricació industrial del sabó es realitza en unes grans calderes, en les quals s’introdueix una solució alcalina (lleixiu) amb greixos fosos. Es fa bullir durant hores i, a continuació, s’hi afegeix salmorra, que afavoreix la separació del sabó brut. Posteriorment, el sabó és purificat i refinat. El sabó artesà es fabrica a partir d’una mescla de triacilglicèrids d’origen animal (greix de porc, per exemple). Un cop acabat el procés es recull el sabó, s’elimina l’excés de KOH o NaOH i es comprimeix per fer-ne pastilles.
Les molècules de sabó són formades per un extrem hidrocarbonat, lipòfil, i un extrem hidròfil. Quan s’afegeix aigua amb sabó a una superfície bruta de greix, l’extrem lipòfil de les molècules del sabó se situa damunt el greix i el dissol. Gràcies a l’agitació, les partícules de greix envoltades pel sabó suren en l’aigua.
Les ceres recobreixen les superfícies vegetals i les impermeabilitzen, com mostren aquestes gotes d’aigua que rellisquen sobre la fulla.
Les ceres són èsters d’àcids grassos de cadena llarga i un monoalcohol, també de cadena llarga. Es tracta de substàncies sòlides, hidròfobes (repel·leixen l’aigua), resistents als agents químics, amb un alt poder energètic i que sovint formen làmines o cutícules impermeables. Aquestes cutícules cobreixen diversos òrgans vegetals, com per exemple les fulles i els fruits.
Les abelles produeixen la cera a partir de l’àcid palmític i la utilitzen per construir els compartiments de les bresques dels ruscos, on ponen els ous i es desenvolupen les larves.
Diversos animals vertebrats tenen glàndules que segreguen ceres amb les quals lubrifiquen i impermeabilitzen la pell, els pèls, la llana, les plomes (en el cas de les aus aquàtiques), etc. Alguns vertebrats marins, com ara les balenes, fan servir les ceres que elaboren com a matèria de reserva energètica (espermaceti de la balena).
Els fosfoglicèrids, lípids saponificables que contenen fòsfor, són els principals constituents de la bicapa lipídica de la membrana de les cèl·lules eucariotes. La molècula típica dels fosfoglicèrids, el grup més abundant de fosfolípids o lípids amb fòsfor, inclou una molècula de glicerol (glicerina), dues molècules d’àcids grassos i àcid fosfòric. A més, molt sovint contenen alcohol o un aminoalcohol que esterifica l’àcid fosfòric.
La molècula dels fosfoglicèrids és amfipàtica, amb un extrem hidròfil i l’altre lipòfil. En presència de l’aigua, les molècules dels fosfoglicèrids s’agrupen espontàniament i formen monocapes, micel·les, bicapes i liposomes, on els extrems lipòfils tendeixen a amagar-se de l’aigua. Les bicapes de fosfoglicèrids constitueixen l’estructura de les membranes cel·lulars.
Estructura polar d’una molècula de fosfolípid amb un extrem hidròfil polar format per l’àcid fosfòric i un alcohol i amb un extrem lipòfil format per la glicerina i dues cadenes hidrocarbonades de dos àcids grassos (R1 i R2).
Existeix una gran varietat natural de fosfoglicèrids, segons la naturalesa de l’alcohol (X–OH) que s’uneix a l’àcid fosfòric (i a banda de quins siguin els dos àcids grassos de la molècula). El més senzill de tots és l’àcid fosfatídic, que no té cap X–OH i és l’intermediari cel·lular per a la síntesi de la major part de fosfoglicèrids. Els que més abunden a les membranes cel·lulars són els fosfoglicèrids de colina o lecitines, amb colina com a X–OH, els fosfoglicèrids d’etanolamina o cefalines, amb etanolamina com a alcohol X–OH, i els fosfoglicèrids de serina.
Àcid fosfatídic
Fórmula general d’un fosfoglicèrid
Principals alcohols (X-OH) presents en els fosfoglicèrids
Etanolamina
Composició química dels fosfoglicèrids.
Fórmula general de la lecitina (= fosfatidilcolina o fosfoglicèrid de colina)
Glicerina Àcids grassos Àcid ortofosfòric Alcohol (X–OH)
Els fosfoglicèrids, com les lecitines, són substàncies tensioactives que tenen la capacitat de disminuir la tensió superficial dels líquids, la qual cosa, en una dispersió aquosa amb una fase dispersa constituïda per un lípid no miscible, augmenta l’estabilitat de l’emulsió. És a dir, les lecitines faciliten la conservació de les emulsions, les quals, per si soles, tendeixen a flocular (es tallen). És per aquest motiu que es fan servir com a emulgents o emulsionants en la cuina (salsa maionesa, mostassa, etc.) i en la indústria alimentària (per donar més consistència a una gran varietat de cremes, mousses, etc.). Això passa perquè la part hidròfoba de la molècula de la lecitina contacta amb les gotes de greix, que d’aquesta manera es poden dispersar bé en l’aigua, ja que al mateix temps la part hidròfila de la lecitina s’uneix a les molècules d’aigua. En un medi una mica àcid, moltes d’aquestes molècules tensioactives
Fosfat
Esfingosina
Àcid gras
Esquema d’una esfingomielina (esfingolípid amb colina).
Els fosfoglicèrids, com els altres lípids polars, en presència d’aigua formen monocapes, micel·les i bicapes de fosfoglicèrids.
Aire
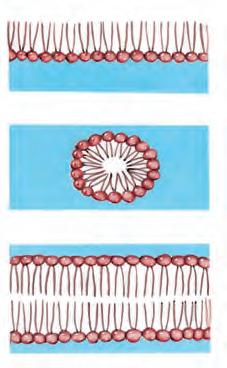
Aigua
Monocapa de fosfoglicèrid
Micel·la de fosfoglicèrid
Aigua
augmenten la seva càrrega elèctrica. Això n’incrementa les propietats emulgents i també fa que les gotes de greix, ja ben disperses pel seu recobriment de fosfoglicèrids, s’agrupin en gotes més grosses però igualment estables. El resultat és que la mescla perd viscositat i es fa més clara o lleugera.
Una mica de sal també ajuda a mantenir estables les emulsions que contenen proteïnes, ja que contribueix a l’estabilitat dels col·loides i, al mateix temps, evita que la mescla floculi. La temperatura –que influeix sobre la tensió superficial dels líquids– també hi ajuda, ja que si és massa baixa en dificulta l’estabilitat.
2.6. Els esfingolípids i els glucolípids
Són dos grups de greixos saponificables, no ben bé excloents, i lípids estructurals de les membranes cel·lulars, especialment del sistema nerviós. Els esfingolípids són compostos per un àcid gras, una molècula d’àcid fosfòric, una molècula d’un alcohol X–OH i una molècula de l’aminoalcohol esfingosina o el seu derivat saturat, la dihidroesfingosina. Com es pot veure, són gairebé anàlegs als fosfoglicèrids i tenen propietats físiques similars, com ara la polaritat. Els esfingolípids s’originen a partir de les ceramides (èsters formats per la unió de l’àcid gras amb l’esfingosina). Els esfingolípids més importants són les esfingomielines, les quals tenen colina com a alcohol X–OH i són els components principals de les beines de mielina dels axons de les cèl·lules nervioses.
També són similars els glucolípids i, sobretot, els glucoesfingolípids, que a més de ceramides contenen també un glúcid.
Els cerebròsids (en els quals el glúcid és un monosacàrid) abunden en les membranes de les neurones que formen la matèria blanca del cervell i en les beines de mielina, mentre que els gangliòsids (en els quals el glúcid és un oligosacàrid) abunden en les membranes de les neurones de la matèria grisa del cervell i en les beines de mielina.
Estructura de les bicapes de fosfoglicèrids, característiques de les membranes cel·lulars
Els esteroides són lípids insaponificables derivats de l’esterà (ciclopentaperhidrofenantrè), una estructura hidrocarbonada cíclica formada per diversos anells en la qual hi ha fixades una o més cadenes laterals. Els més abundants són els esterols, que comprenen el colesterol, els àcids biliars, les hormones esteroïdals i les vitamines del grup D.
El colesterol és un component de les membranes de les cèl·lules animals. És una substància cèria, blanquinosa i insoluble en aigua que s’origina en el fetge i es troba en el plasma sanguini en forma de lipoproteïnes. L’excés de colesterol en el plasma sanguini humà és un factor de risc important per a l’arteriosclerosi, malaltia que provoca la pèrdua d’elasticitat de les artèries i la reducció del seu diàmetre intern. Tanmateix, és el precursor biològic per a la síntesi d’altres esterols importants, com ara els àcids biliars i les hormones esteroïdals.
Els àcids biliars s’originen en el fetge a partir del colesterol. Aquests àcids són abocats a l’intestí prim, on emulsionen els greixos i n’afavoreixen, d’aquesta manera, la digestió i l’absorció.
Entre les hormones de composició esteroïdal, destaquen el cortisol i l’aldosterona, segregades per les glàndules suprarenals, i diverses hormones sexuals, com ara la testosterona, la progesterona i l’estradiol.
La vitamina D la prenem amb la dieta, o bé s’origina per acció de la llum solar damunt un derivat del colesterol que hi ha a la pell. Aquesta vitamina és necessària per al bon funcionament del metabolisme del calci i del fòsfor, i, per tant, per a un bon creixement dels ossos. La deficiència d’aquesta vitamina provoca el raquitisme, que consisteix en un estovament i una deformació dels ossos.
(hormona sexual femenina)
Progesterona (hormona sexual femenina)
Fórmules d’alguns dels esteroides més importants i anell de l’esterà, del qual deriven.
De plantes aromàtiques com ara la farigola i l’espígol s’obtenen essències que tenen aplicacions farmacèutiques i cosmètiques.
2.8.
Els terpens o isoprenoides són lípids insaponificables que tenen com a unitat estructural l’hidrocarbur isoprè (metilbutadiè). Segons el nombre de molècules d’isoprè que contenen, es distingeixen diversos grups de terpens.
Els monoterpens, amb dues unitats d’isoprè, són els constituents principals de les essències, causants de la fragància de moltes plantes aromàtiques. Alguns exemples d’essències són el geraniol dels geranis, el mentol de la menta, el timol de la farigola, la càmfora del camforer, etc. Les essències es poden extreure en forma d’olis essencials per destil·lació de la part de la planta que les conté, i s’utilitzen en la fabricació de cosmètics i perfums.
Entre els diterpens, amb quatre molècules d’isoprè, hi ha el fitol, component de la molècula de clorofil·la.
En el grup dels tetraterpens, amb vuit unitats d’isoprè, s’hi troben els carotens, de color vermell, i les xantofil·les, de color groc, pigments que intervenen en la fotosíntesi. Així mateix, són els precursors de diverses vitamines (A, E i K).
Fórmula de l’isoprè o unitat constituent dels terpens i exemples de monoterpens (geraniol), diterpens (fitol) i tetraterpens i derivats (β-carotè i vitamina E).
Entre els politerpens, amb milers d’unitats d’isoprè, destaca el cautxú, producte que s’extreu de diverses plantes tropicals i que té nombroses aplicacions industrials. La goma de mastegar té una composició química similar.
β-carotè (quan s’escindeix, en forma oxidativa, produeix dues molècules de vitamina A1)
E (α-tocoferol)
Indica els límits de les unitats d’isoprè Indica l’escissió del β-carotè
Les prostaglandines són lípids emparentats amb l’àcid gras insaturat prostanoic. Van ser descobertes l’any 1934 en secrecions de la pròstata de moltó, i el seu nom fa referència a aquesta glàndula. Actualment se’n coneixen una trentena, presents a tots els teixits, que les cèl·lules sintetitzen a partir dels àcids grassos linoleic, linolènic i araquidònic. Per bé que sovint en concentracions molt petites, les prostaglandines tenen múltiples funcions en l’organisme: relaxen els vasos sanguinis, estimulen la contracció de la musculatura llisa, afavoreixen la circulació, regulant-ne la pressió, modulen l’acció hormonal i reproductiva, etc. Algunes tenen un ús terapèutic, ja que s’utilitzen per induir el part o provocar l’avortament.
Sovint, quan les cèl·lules han estat danyades, alliberen prostaglandines. Són aquestes molècules les que causen les reaccions típiques d’inflamació i dolor locals: congestió, enrogiment, activació de l’agregació de les plaquetes, augment de la temperatura, etc. Precisament aquí rau l’acció alleugeridora de l’aspirina o àcid acetilsalicílic, el medicament més emprat arreu del món: inhibeix l’enzim que afavoreix la reacció de síntesi d’aquestes prostaglandines a partir de l’àcid araquidònic.
Mentre són a l’estómac, els aliments rics en greixos experimenten pocs canvis per acció del suc gàstric. Barrejats amb els glúcids i les proteïnes, formen el quim, que passa a l’intestí prim. En el duodè, els àcids biliars emulsionen els triglicèrids i els enzims del grup de les lipases els hidrolitzen, amb formació d’àcids grassos i de glicerina.
Mitjançant l’absorció intestinal, els productes derivats de la digestió dels greixos passen al torrent circulatori, que els transporta al fetge i als diferents teixits. Una part dels greixos (els triglicèrids, els fosfolípids i el colesterol) circula en el plasma sanguini en forma de lipoproteïnes, que són uns complexos formats per l’associació de lípids amb algunes proteïnes. Les lipoproteïnes plasmàtiques es classifiquen en funció de la densitat:
– Lipoproteïnes de densitat alta (HDL).Són les transportadores més importants dels fosfolípids i se sintetitzen en el fetge.
– Lipoproteïnes de densitat baixa (LDL).Són les principals transportadores del colesterol.
– Lipoproteïnes de densitat molt baixa (VLDL).Són les principals transportadores dels triglicèrids.
– Quilomicrons.Són les lipoproteïnes plasmàtiques més grosses i també transporten principalment triglicèrids.
La proporció entre la concentració de les diferents lipoproteïnes en el plasma és un bon indicador del risc d’arteriosclerosi. El risc augmenta a mesura que s’incrementa la concentració de lipoproteïnes de densitat baixa (LDL), mentre que les d’alta densitat (HDL) exerceixen un cert efecte protector.
12 8
Fórmula de l’àcid prostanoic.
Percentatges energètics dels diferents constituents de la dieta en els 10 països més rics (esquerra) i en els 10 països més pobres, segons la FAO.
La tradicional dieta mediterrània, caracteritzada per una elevada ingesta de peix, de fruites i de verdures i per l’ús de l’oli d’oliva, està amenaçada per la tendència cada cop creixent en la joventut de consumir menjar ràpid o fast-food, més calòric i no tan sa. És una llàstima, ja que la dieta mediterrània, i especialment el consum d’oli d’oliva, té una influència positiva sobre la salut. Efectivament, l’oli d’oliva té una composició d’àcids grassos molt equilibrada, amb un contingut ric en àcid oleic, moderat en àcid linoleic (ambdós àcids grassos insaturats) i pobre en àcids grassos saturats. No tan sols no aporta colesterol –com no ho fa gairebé cap greix vegetal–, sinó que la presència d’àcids grassos insaturats ajuda a reduir-ne la presència a la sang i a disminuir el risc d’arteriosclerosi.
L’oli d’oliva s’extreu del fruit de l’olivera i se’n distingeixen tres categories bàsiques: l’oli verge d’oliva,l’oli d’oliva i l’oli de pinyolada o de sansa. L’oli verge d’oliva és el més aromàtic. S’obté únicament per pressió, aixafant les olives i decantant-ne l’aigua. Si bé a vegades és massa àcid, és l’únic oli comercial que no ha de ser necessàriament refinat. Un cop extret, a la massa restant encara hi queda molt oli, el qual, tanmateix, no es pot obtenir si no és arrossegant-lo per mitjà de dissolvents. En aquest procés de refinatge s’eliminen, també per mitjà de tractaments químics, les olors i els sabors indesitjables. Mesclat amb oli verge dóna el denominat oli d’oliva que, segons l’antiga pràctica comercial, era etiquetat com a «oli pur d’oliva». Aquesta denominació, però, s’ha abandonat, ja que és molt poc adequada perquè, si amb el mot pur es volia dir pristí, llavors ho és més el verge. D’acord amb la legislació comunitària, s’anomena oli de pinyolada o de sansa el que s’extreu per un procés de refinatge de la pinyolada, és a dir, de la pasta resultant de les operacions anteriors. Habitualment es mescla amb oli verge per millorar-ne les propietats organolèptiques.
Hi ha altres olis d’origen vegetal (per exemple, l’oli de blat de moro, de gira-sol o de cacauet) que també són perfectament sans, és a dir, amb un contingut equilibrat d’àcids grassos. En qualsevol cas, però, es tracta sempre d’olis refinats. Ara bé, no sempre un oli d’origen vegetal és sinònim de greix amb alts continguts d’àcids grassos insaturats i, per tant, beneficiós per a la salut. Per exemple, l’oli de copra (que s’extreu del coco) i l’oli de palma són greixos amb un volum mundial de comerç molt gran que, tanmateix, contenen molts àcids grassos saturats i pocs àcids grassos insaturats.
Això posa de manifest que l’etiquetatge dels productes no sempre dóna tota la informació necessària. Per exemple, si tenim una conserva que segons l’etiqueta conté oli vegetal, sense especificar de quin oli vegetal es tracta, és impossible saber quin contingut d’àcids grassos consumirem amb el producte.
7.12. Explica què volen dir els termes hidròfil, hidròfob, lipòfil i lipòfob. Explica també el significat dels termes polar i amfipàtic aplicats a una molècula.
7.13. Digues el nom de tres lípids amb funcions estructurals.
7.14. Quin és el grup funcional principal dels àcids grassos? Escriu-ne la fórmula. Explica les diferències existents entre els àcids grassos saturats i els insaturats. Explica què és un àcid gras essencial i posa’n tres exemples.
7.15. Fes una llista d’aliments que continguin greixos saturats i una altra d’aliments que en continguin d’insaturats.
7.16. Quines molècules senzilles formen part dels acilglicèrids? A quines molècules s’enllaça el glicerol en aquests lípids? Quantes molècules de glicerol i d’àcids grassos contenen els triacilglicèrids?
7.17. Escriu la fórmula d’un triacilglicèrid que contingui dues molècules d’àcid esteàric, de fórmula CH3(CH2)16COOH, i una d’àcid caproic, de fórmula CH3(CH2)4COOH.
7.18. Digues quina és la diferència principal entre els dos grans grups de lípids.
7.19. Un dels teixits animals és l’adipós. Busca la informació necessària per respondre a les preguntes següents:
a)Com es diuen les cèl·lules que formen aquest teixit?
b)Quins lípids s’acumulen en aquestes cèl·lules?
c)Quines funcions fa aquest teixit?
d)A quina part del cos humà tendeix a acumular-se?
e)Quines relacions hi ha entre l’obesitat i el teixit adipós?
7.20. Esmenta el nom de quatre substàncies lipídiques que desenvolupin funcions de regulació.
7.21. Tal com pots veure si observes la fotografia de la dreta, hi ha algun tipus de lípid que recobreix i fa impermeable les pomes. Quin és? Explica les característiques generals d’aquest lípid i digues si també es troba en algun animal.
7.22. En el mercat hi ha tres tipus de llet, segons el seu contingut en greixos. Digues quins són i quin és el contingut de greix per a cada tipus. Quins productes de gran consum s’obtenen del greix de la llet?
7.23. Copia i completa la reacció reversible de sota col·locant al lloc correcte els termes esterificació, èster i hidròlisi. Defineix-los.
7.24. Completa aquest quadre amb els lípids següents (o els seus derivats): àcid oleic, cera, fosfoglicèrid, oli d’oliva, esfingomielina, colesterol, progesterona, sèu, cautxú i mantega.
7.25. Escriu la fórmula química del colesterol i el grup de lípids al qual pertany. Escriu també a quin lloc de la cèl·lula es troba i quines són les seves funcions. Esbrina quins són els aliments rics en colesterol i descriu breument quin és el principal problema de salut relacionat amb la presència d’un excés de colesterol a la sang.
7.26. Digues si són certes o falses les frases següents:
a) Els esteroides són lípids saponificables.
b) El colesterol és un component de les membranes de les cèl·lules animals.
c) Els àcids grassos insaturats es caracteritzen per presentar algun doble enllaç a la cadena hidrocarbonada.
d) Les ceres són lípids que repel·leixen l’aigua.
e) Els animals emmagatzemen energia en forma de lípids del grup dels triacilglicèrids.
f) Els triacilglicèrids suren en l’aigua.
g) Per hidròlisi de la sacarosa s’origina glucosa i ribosa.
h) L’esterificació i la hidròlisi són reaccions oposades.
i) Els esfingolípids són característics de les cèl·lules musculars.
j) Els heteropolisacàrids són glúcids formats per monosacàrids i per molècules no glucídiques.
7.27. Formula totes les aldohexoses existents i assenya-la les que tenen més interès biològic.
7.28. Formula els monosacàrids i derivats següents:
a) α-D-glucosa
b)àcid β-D-galacturònic
c)àcid D-mannurònic
d) α-D-galactosamina
7.29. Utilitzant els grups funcionals adequats, escriu les fórmules dels monosacàrids aldotriosa, aldopentosa i cetohexosa. Indica’n, també, la fórmula empírica i el nom comú.
7.30. Indica quin grup de glúcids té la fórmula empírica (CH2O)n Com s’anomenen els glúcids amb un valor de n =5? Quines dues sèries de compostos s’inclouen en aquesta denominació? Esmenta el nom d’un d’aquests glúcids, que forma part de les biomolècules que intervenen en els processos de l’herència.
7.31. Respon a les preguntes següents:
a)Quan es diu que un àtom d’una molècula orgànica és asimètric?
b)Quants àtoms asimètrics i quants isòmers té la glucosa?
7.32. La glucosa i la fructosa tenen la mateixa fórmula, C6H12O6. Són isòmers? Raona la resposta.
7.33. Explica quines són les diferències químiques entre la ribosa i la desoxiribosa i indica quin àtom de carboni i quins grups funcionals afecten.
7.34. Escriu la fórmula molecular de la lactosa. Quins monosacàrids la formen?
7.35. Quina és la diferència entre les molècules de la glucosa i les de la glucosa β? Com s’anomenen aquestes dues molècules? Escriu la fórmula cíclica de cadascuna d’aquestes molècules.
7.36. Defineix els termes disacàrid i polisacàrid i explica el tipus d’enllaç que dóna lloc a aquests glúcids.
7.37. Quin glúcid és conegut amb el nom de sucre de canya? Quins glúcids senzills el formen? De quina planta es pot obtenir aquesta substància? Escriu-ne la fórmula molecular i la cíclica.
7.38. Algunes de les substàncies que una persona pot ingerir al llarg d’un dia en quantitats diverses són, per exemple, patates, llet, sucre, cervesa, verdura, carn, fruita i pa.
Resol les qüestions que hi ha a continuació:
a) Esmenta el principal glúcid de cadascun d’aquests aliments i digues a quin grup pertany.
b) A quina part del tub digestiu es produeix la digestió d’aquests aliments i quins enzims hi intervenen?
c) Quin és el principal monosacàrid que es produeix per digestió d’aquests glúcids? Quina funció fa aquest monosacàrid a l’interior del cos?
d) Un dels glúcids ingerits amb la dieta no aporta cap nutrient, ni energètic, ni estructural, ni regulador. Quin és? Quina funció fa al tub digestiu?
7.39. Fes un estudi comparatiu de melmelades. Selecciona’n tres –clàssica, dietètica (per a diabètics, per exemple) i light– i estudia-les.
a)Anota els ingredients segons el que indiquin les etiquetes.
b)Tasta-les i digues si són igual de dolces.
c)Calcula, per a cada un dels tipus de melmelada, l’aportació energètica d’una ració de 30g.
d)Una melmelada casolana té, bàsicament, fruita i sucre. Les del teu estudi, què més tenen? Quina mena de substàncies són? Per a què s’usen?
e)Redacta un informe global comparatiu.
7.40. Disposes de quantitats iguals de glucosa i de midó. Explica detalladament quines proves químiques cal fer al laboratori per diferenciar aquestes dues substàncies. Esmenta els productes que et calen i l’instrumental necessari.
7.41. Estudia l’etiqueta d’un paquet de xiclets.
a)Anota’n tots els ingredients.
b)Classifica’ls químicament i escriu-ne la fórmula aproximada.
c)Digues per quin motiu creus que cada un dels ingredients forma part del xiclet.
7.42. Fes un estudi comparatiu dels olis que hi ha en un supermercat.
a)Esbrina quina és la composició dels diferents tipus d’olis que s’hi venen. Després, escull-ne tres o quatre marques, analitza allò que diuen les etiquetes i apunta’n el contingut.
b)Fes un informe que expliqui els conceptes de composició, acidesa, refinatge i les categories comercials dels olis d’oliva.
7.43. Formula una cefalina amb àcid esteàric i àcid araquídic.
7.44. Enumera les principals molècules senzilles que formen els fosfolípids, com ara el representat en la il·lustració següent. Quina estructura cel·lular és formada majoritàriament per aquests lípids?
7.45. La mel i la cera són substàncies que trobem en un rusc d’abelles. Fes les consultes bibliogràfiques oportunes i defineix aquestes substàncies: explica’n l’origen i indica els principals glúcids o lípids que es troben en la seva composició.
7.46. Defineix els termes saponificable i insaponificable. A partir de quins lípids s’obtenen àcids grassos? Esmenta tres processos industrials en què es facin servir àcids grassos.
7.47. El paper i el sabó són dos productes de gran consum. El primer s’origina a partir d’un glúcid i el segon, a partir de lípids. Explica com es fabriquen el paper i el sabó, quines són les primeres matèries que es fan servir i quin origen tenen. Esmenta alguns aspectes mediambientals relacionats amb la indústria paperera i amb la del sabó.
7.48. Escriu la fórmula desenvolupada d’un monoglicèrid de l’àcid esteàric, la fórmula del qual és CH3–(CH2)16–COOH.
7.49. Indica el grup a què pertanyen els lípids i derivats lipídics següents, el lloc on es troben i les seves aplicacions: àcid oleic, cera, fosfoglicèrid, oli, esfingomielina, colesterol, progesterona, sèu, cautxú, mantega.
7.50. Relaciona cada terme o concepte del primer grup amb el corresponent del segon grup.
Primer grup: esteroide, àcid gras, glúcid monosacàrid, homopolisacàrid, glúcid disacàrid, bicapa lipídica.
Segon grup: glicogen, sacarosa, colesterol, fosfoglicèrid, àcid palmític, gliceraldehid.
1. Esmenta el nom d’una vitamina de composició lipídica relacionada amb el creixement dels ossos. Quina malaltia està relacionada amb la seva carència? Amb quin lípid està relacionada aquesta vitamina?
2. Els àcids biliars, els carotens, el cortisol i el geraniol tenen una composició lipídica. Indica a quin grup de lípids pertanyen i la seva funció.
3. Escriu la fórmula global [Ca: x (n – y)] dels compostos següents:
a)àcid araquidònic
b)àcid γ-linolènic (isòmer que es diferencia de l’α-linolènic perquè el primer carboni afectat per un doble enllaç és el 6)
4. En la il·lustració següent es representa una important estructura cel·lular. Com s’anomena? Quins són els seus components lipídics?
5. La major part dels lípids integrants de la dieta humana (oli, mantega, greix de la carn, greix de la llet, etc.) són triglicèrids. Respon a les qüestions següents:
a) A quina part del tub digestiu té lloc la digestió dels lípids?
b) Quines substàncies són necessàries per poder digerir els lípids? Quina funció concreta fan aquestes substàncies?
c) Quines molècules s’originen per la digestió dels triglicèrids? Quina és la funció d’aquestes molècules?
6. Quines mesures pots aplicar per evitar o retardar el fet que la mantega es torni rància?
7. Quins dos tipus de molècules formen els acilglicèrids? Quants grups d’acilglicèrids es coneixen?
8. Els àcids grassos són components essencials de nombrosos lípids. Repon a les preguntes següents, que fan referència als àcids grassos:
a)Quins elements químics els formen?
b)Quines són les dues parts que formen una molècula d’àcid gras?
c)Quin caràcter químic tenen els àcids grassos?
d)Quin criteri químic es fa servir per classificar els àcids grassos en dos grups? Escriu el nom de dos àcids grassos de cada grup i el d’alguna de les molècules o dels productes en què es troben.
9. El glicogen i els triglicèrids són els dos materials de reserva més abundants en els animals. Digues a quines cèl·lules abunden, quines molècules els formen i quin és el seu valor energètic.
10. Entre altres coses, en unes anàlisis de sang s’indica el contingut en glucosa i en lípids del plasma sanguini. Per fer-ho s’utilitzen els termes glucèmia, colesterolèmia, triglicèrids, HDL i LDL, anomenats paràmetres hematològics. Escriu una definició de cada terme. Consulta unes anàlisis de sang, o bibliografia adequada, i esbrina quins són els valors normals d’aquests paràmetres. Descriu, també, alguns trastorns de salut que estan relacionats amb uns valors anormals d’aquests paràmetres.
11. En el gràfic de sota es representen les corbes de glucèmia de dues persones, és a dir, el contingut de glucosa en el plasma sanguini després d’haver-los administrat
per via oral una dissolució de 50 grams de glucosa. A partir de la ingestió de la glucosa, cada 30 minuts se’n determina la concentració a la sang.
a)Quina de les dues corbes correspon a una persona diabètica?
b)Comenta les diferències entre les dues corbes.
c)Quines són les hormones que intervenen en la regulació de la glucèmia? Digues a quina glàndula s’originen aquestes hormones i la funció que tenen.
d)Quina d’aquestes hormones falla en el cas de les persones diabètiques?
e)Explica quines són les mesures dietètiques i mèdiques que han d’adoptar les persones diabètiques.
12. El propantriol és un component de nombrosos greixos. Escriu la fórmula química d’aquest component i indica’n el nom comú.
13. Identifica amb precisió les molècules que tens a sota. Digues en quin grup es classifiquen i, en la mesura que puguis, de quina substància concreta es tracta en cada cas.
Objectius
a) Ús d’utillatge i tècniques bàsiques de laboratori.
b) Preparació de dissolucions i reactius.
c) Identificació de diferents principis immediats per mitjà de reactius específics que donen reaccions característiques de grups concrets de les seves molècules.
d) Estudi d’algunes propietats fisicoquímiques dels lípids.
e) Disseny d’experiments, comprovació d’hipòtesis, recollida de dades i confecció d’informes.
Material
Genèric
Quadern de notes, tubs d’assaig i gradeta, pinces de laboratori, cremadors, suports o trespeus i reixeta protectora, microscopi amb filtre polaritzador, aigua destil·lada, alcohol etílic, alcohol metílic, micròtom de mà, navalla histològica, portaobjectes, cobreobjectes, comptagotes, oli d’oliva, mantega, xicres de laboratori, detergent, ous, morter, sal (NaCl), vinagre o suc de llimona, cristal·litzadors o altres recipients per usar com a motlles.
Productes, utillatge i reactius
Balança de precisió, pipetes de 2 i 5 cm, bureta de 25 ml, vasos de precipitats (1000, 500), erlenmeyer de 250 ml, proveta de 50 ml, licor de Fehling A*, licor de Fehling B*, lugol*, sudan III, tinta xinesa vermella, glucosa, galactosa, lactosa, sacarosa, midó, tetraclorur de carboni, èter etílic, benzè, NaOH o KOH, solució estàndard etanòlica d’hidròxid de potassi (0,1 mol dm–3), fenolftaleïna (dissolució a l’1% en etanol de 50°).
(*) Es poden preparar prèviament a partir dels seus components, tal com es descriu més endavant.
a) La prova de Fehling per a la identificació dels sucres
Si mesclem unes gotes de licor de Fehling A (una dissolució aquosa de sulfat de coure CuSO4) amb unes gotes de licor de Fehling B (solució aquosa de tartrat sòdic i hidròxid potàssic), es forma hidròxid cúpric (en forma d’ió complex insoluble, però sense precipitar), que dóna un color blau, propi del Cu2+ .
En canvi, en presència del grup reductor (aldehid o cetona) dels sucres (glúcids de molècula petita) l’ió Cu2+ passa a C+ (primer en forma de CuOH i, després, de Cu2O), que fa virar el blau a taronja bru.
Posa aigua en un tub d’assaig, que et servirà de control, i aboca en altres tubs d’assaig solucions aquoses al 5% de diversos glúcids (per exemple, glucosa, galactosa, lactosa, sacarosa i midó). Afegeix a cada tub –amb pipetes diferents– 1 cm3 dels licors de Fehling A i B. Agafa’ls amb una pinça de laboratori i escalfa’ls suament amb el cremador mentre els agites. Després, copia la taula que tens a sota, completa-la i redacta un informe amb la interpretació dels resultats obtinguts.
Resultat (color)
Interpretació
Respon a les preguntes que hi ha a continuació:
a)Què passa quan el CuSO4 es dissol en aigua? Escriu-ne la reacció.
b)Què li passa al coure del CuSO4 davant del grup reductor d’un sucre? Escriu-ne la reacció de transferència electrònica.
c)Com ja s’ha dit, el color taronja bru indica reacció positiva i el blau, negativa. Cal tenir en compte que perquè els grups reductors es facin notar han d’estar lliures i no formar part dels enllaços glucosídics. Explica què passaria si en els tubs que han donat negatiu féssim la hidròlisi dels glúcids que contenen i repetíssim la prova.
b) Identificació del midó. La prova del lugol
El midó es tenyeix d’un intens color blau violeta en presència de lugol (solució aquosa saturada de iodur potàssic i iode). Aquesta reacció és una característica exclusiva del midó, per això serveix per identificar-ne la presència. De fet, no hi ha reacció química, sinó que és més simple: el lugol queda absorbit entre les cadenes enroscades de les glucoses del midó.
Analítica
Prepara novament cinc tubs d’assaig amb els cinc glúcids. En lloc del tub control, un company o companya prepararà un sisè tub problema sense revelar-ne, de moment, el contingut. Afegeix a cada tub tres o quatre gotes de lugol i agita’ls suaument.
Recollida i interpretació de les dades
Aspecte d’una patata tractada amb unes gotes de lugol.
Copia la taula següent, completa-la i interpreta els resultats obtinguts.
Resultat (color)
Interpretació
c) Identificació del midó en els amiloplasts
Amb el mateix lugol és fàcil identificar la presència del midó en els amiloplasts o plastidis que, en els òrgans de reserva dels vegetals, l’emmagatzemen. És el cas de les patates.
D’altra banda, els amiloplasts presenten, observats amb llum polaritzada, una típica figura de refringència en creu de Malta.
Analítica
Amb una agulla amb mànec o una llanceta raspa sobre un portaobjectes la polpa d’una patata.
Figures de refringència en creu de Malta fruit de l’observació d’amiloplasts al microscopi amb llum polaritzada.
Gradeta amb dos tubs d’assaig en què s’ha posat lugol: l’un conté midó i s’ha tenyit de blau; l’altre, no.
Posa-hi un parell de gotes d’aigua i un cobreobjectes i mira la preparació al microscopi. Seguidament, amb el micròtom i la navalla histològica talla làmines fines d’un fragment de patata. Escull les millors làmines i disposa-les sobre un portaobjectes. Afegeix-hi una gota d’aigua i el cobreobjectes i mira-ho al microscopi.
a)Quin aspecte tenen les cèl·lules?
b)Es veuen bé les membranes?
c)De què són plenes?
Separa el cobreobjectes i tenyeix la patata amb unes gotes de lugol. Espera 30 segons, renta suaument la preparació amb gotes d’aigua i torna-la a muntar. Tanmateix, si ho mires sense esperar el temps de tinció podràs veure com els amiloplasts es van tenyint de mica en mica.
a)Identifiques ara els amiloplasts? Dibuixa les cèl·lules i aquests plastidis.
b)Fes una preparació de tall de patata sense tenyir i mira-la al microscopi amb el filtre polaritzador posat. Quin aspecte té? Què s’hi veu?
d) Els lípids es tenyeixen específicament amb el sudan III
El sudan III és un colorant que tenyeix específicament molts dels lípids i que, per tant, s’utilitza per identificar-los.
Analítica
Prepara una bateria de tubs d’assaig (2 de cada) amb aquests productes: a) uns 3 cm3 d’oli d’oliva; b) mantega fosa; c) una dispersió aquosa (al 5%) de glucosa; d) una dispersió aquosa (al 5%) de midó.
A continuació, posa-hi dues o tres gotes de sudan III i, si vols certificar les propietats d’aquest colorant, repeteix tot l’experiment amb tinta xinesa de color vermell.
Recollida i interpretació de les dades
Copia la taula que tens a sota, completa-la i interpreta els resultats obtinguts.
Resultat (color)
Interpretació
Els lípids tenen en comú que no es dissolen en els dissolvents polars (aigua, alcohol, etc.) i que sí que ho fan, en canvi, en els no polars (tetraclorur de carboni, benzè, èter etílic, etc.). Aquesta pràctica té precisament aquest objectiu: estudiar on i com es dissolen els lípids.
Com que aquestes darreres substàncies són molt inflamables, cal anar amb molt de compte i prendre totes les precaucions possibles.
Analítica
Després d’haver comprovat que al laboratori no hi ha cap cremador encès, prepara una bateria de deu tubs d’assaig, cinc amb 2 cm3 d’oli d’oliva i cinc amb una quantitat equivalent de mantega.
Afegeix a cada parella de tubs 4 o 5 cm3 de dissolvent: aigua, alcohol, tetraclorur de carboni, benzè i èter etílic. Agita enèrgicament els tubs.
a)Posa una mica de cada barreja en unes xicres de laboratori i mirales amb la lupa binocular.
Què hi veus? Quins tipus de dispersió són, en realitat? Com és la fase dispersa?
b)Afegeix als tubs d’assaig unes gotes de detergent, agita’ls i repeteix l’observació macroscòpica i microscòpica. Què ha passat?
Recollida i interpretació de les dades
Copia les taules següents i sintetitza-hi les teves observacions amb la interpretació dels resultats obtinguts. Després, fes-ne una valoració global (explica, per exemple, per què els greixos taquen, com s’eliminen aquestes taques de la roba, quina relació té aquest fet amb les propietats de les emulsions i de les substàncies emulsionants, etc.).
d’assaig
Interpretació
Interpretació
f)La salsa maionesa: els fosfoglicèrids són emulsionants potents
Després d’haver fet les activitats anteriors ja t’has familiaritzat amb la insolubilitat dels greixos en aigua i amb la naturalesa de les emulsions; per tant, saps què passa si mesclem oli amb aigua. Llavors, si un ou no és sinó una dispersió aquosa, per què lliga la salsa maionesa? Perquè una bona part del total dels lípids que conté un ou (acilglicèrids, colesterol, etc.) són fosfoglicèrids, especialment lecitina.
Analítica
En un morter prepara maionesa (amb un ou, oli i un pessic de sal). Bat vigorosament l’ou mentre vas afegint l’oli de mica en mica, fins que la salsa estigui ben lligada.
a)Per què cal batre fortament la mescla?
b)Quan la maionesa es feia a mà, s’acostumava a fer en un morter. Un recipient com per exemple un morter, amb un fons reduït, és millor per fer maionesa que no pas un altre de fons pla i ample.
Per què?
c)Si la maionesa no s’ha lligat bé, què es pot fer per posar-hi remei? Creus que hi pot haver influït la temperatura dels ingredients? Per què?
d)Què passa si poses unes gotes de vinagre o de suc llimona a la maionesa? Per què passa?
e)Quina funció fa la sal en el procés d’emulsió de la salsa?
Interpretació dels resultats
Redacta un informe sobre les propietats físiques dels ingredients i de l’emulsió que formen la maionesa. Afegeix-hi un esquema de les reaccions que hi tenen lloc: escriu –amb els àcids grassos que tu escullis–la fórmula d’una lecitina i indica-hi les parts que s’uneixen a l’aigua i les que s’adhereixen a l’oli.
I un repte
Quanta maionesa es pot fer amb un sol ou?
Si hi ha molt poc oli, la maionesa no es talla gairebé mai. Però si n’hi afegim gaire, es tallarà indefectiblement, tot i que la maionesa ben feta accepta oli fins a un 90% del total de la mescla.
Per tant, si la maionesa es talla, la solució consisteix a afegir-hi més ous o més aigua (de mica en mica, però: dues o tres cullerades per cada tassa d’oli). Aquesta darrera alternativa és més econòmica. El cuiner H. McGee té el rècord de quantitat de maionesa feta amb un sol ou: 24litres.
Si ho has entès i t’hi veus amb cor, prova, a casa, de fer maionesa amb un litre d’oli i un ou. Un cop la tinguis feta no la llencis pas i aprofita-la. Pensa, però, que caldrà guardar-la a la nevera perquè la maionesa és una mescla crua d’aliments i es contamina ràpidament amb bacteris, alguns dels quals, com ara les salmonel·les, són perillosos.
L’índex d’acidesa d’un greix es defineix com el nombre de mil·ligrams d’hidròxid de potassi necessari per a la neutralització dels àcids lliures presents en 1 g de matèria grassa. En els olis, l’índex d’acidesa s’expressa comercialment com el percentatge d’àcids grassos lliures o grau d’acidesa.
Analítica
L’analítica consisteix a fer una valoració amb una solució estàndard, etanòlica, d’hidròxid de potassi, amb indicador de fenolftaleïna.
Posa –amb una exactitud de 0,01g– entre 5 i 10g de l’oli que vols analitzar en un erlenmeyer i afegeix-hi 4 o 5 gotes de dissolució de fenolftaleïna.
Amb la bureta afegeix-hi, gota a gota, la dissolució d’hidròxid de potassi fins a obtenir una coloració rosa permanent.
Càlcul
L’índex d’acidesa ve donat per l’expressió següent:
I = 5,61 (V – V’)/P
on V és el volum de la dissolució d’hidròxid de potassi esmerçat en la valoració anterior, gota a gota; V’ és el volum de la dissolució d’hidròxid de potassi esmerçat en la valoració en blanc, i P, el pes (massa) de la mostra utilitzada.
Per expressar l’índex d’acidesa en termes de grau d’acidesa usarem la fórmula següent:
grau d’acidesa(àcid oleic) = (V – V’) · M/100 P
on M és el pes molecular de l’àcid oleic = 282.
h) La saponificació
La saponificació és el procés químic de formació del sabó. Es tracta de la hidròlisi alcalina dels triacilglicèrids, la qual allibera glicerina i la sal sòdica o potàssica dels àcids grassos (sabó).
Analítica
Posa 100cm3 d’oli d’oliva, 40g de NaOH (o de KOH) i 60cm3 d’aigua en un vas de precipitats gros (perquè en coure farà bromera) o en un recipient similar resistent al foc. Escalfa la mescla fins al punt d’ebullició i deixa-la bullir ben bé durant una hora.
A continuació, afegeix a la mescla 25g de NaCl en 75cm3 i remena-la.
Deixa-la refredar i continua remenant-la.
Decanta el líquid del fons (i també, si n’hi ha, el que ha quedat per damunt de la capa més sòlida) i diposita la part sòlida, superior, en un recipient que farà de motlle.
L’endemà (o si més no al cap d’unes hores) observa què ha passat.
Interpretació dels resultats
Prepara un informe sobre l’experiment dut a terme que contesti, entre altres, les qüestions següents:
a)On és el sabó?
b)Com ho podem fer per estar segurs que es tracta de sabó?
c)El sabó que es ven en els comerços està millorat per mitjà de l’addició d’aromes i colorants. Què podries fer per millorar el teu?
d)Amb quins altres materials podries fabricar sabó?
e)Quin àlcali has emprat, KOH o NaOH?
f)Escriu la reacció química del procés de saponificació.
g)A banda del sabó s’han format altres productes. Quins? On han anat a parar?
Esquema
1.El catabolisme dels glúcids
2. El catabolisme dels lípids
3. El catabolisme dels aminoàcids
4. El catabolisme dels àcids nucleics
Mitocondris (en verd) a l’interior d’una cèl·lula vista a través del microscopi electrònic (fals color).
El catabolisme és el conjunt de reaccions que degraden les biomolècules, amb producció d’energia. Es tracta de processos de ruptura de les cadenes hidrocarbonades dels principis immediats, d’oxidació-reducció, de fosforilació, etc. Una part de l’energia alliberada en les reaccions catabòliques es conserva en forma d’ATP.
Segons la intensitat dels processos catabòlics de les biomolècules, és a dir, segons quina sigui la molècula última acceptora dels electrons, es distingeixen dos tipus de processos: de respiració i de fermentació.
La glucòlisi és un mecanisme molt corrent del qual se serveixen la major part dels organismes per obtenir energia química a partir de compostos orgànics. En condicions anaeròbiques, la glucòlisi és suficient per proporcionar tota l’energia que l’organisme necessita. Tanmateix, si disposa d’oxigen, la cèl·lula pot extreure molta més energia d’un substrat orgànic del tipus de la glucosa.
SALVATORE LURIA, 36 lliçons de biologia (1977)
Habitualment, les cèl·lules utilitzen la glucosa com a font d’energia. El catabolisme de la glucosa inclou dos processos: la glucòlisi i la respiració cel·lular. Aquest últim procés, al seu torn, es divideix en tres fases: la transformació de l’àcid pirúvic en acetil-CoA, el cicle de Krebs i la cadena respiratòria, amb el transport electrònic i la fosforilació oxidativa.
Diferent rendiment energètic de la respiració aeròbica i de la fermentació alcohòlica de la glucosa
respiració: 36 molècules d’ATP
Glucosa
fermentació: 2 molècules d’ATP
La glucòlisi és la via catabòlica més universal mitjançant la qual gairebé tots els organismes obtenen energia a partir de la glucosa. Es tracta d’una via unidireccional (no reversible), de la qual cal remarcar les característiques següents:
– Es produeix en el citosol de totes les cèl·lules.
– La molècula de glucosa s’escindeix en dues molècules d’àcid pirúvic (que s’ionitza en piruvat), metabòlit format per tres àtoms de carboni.
– Únicament s’allibera una petita part de l’energia emmagatzemada en la molècula de glucosa.
– Es tracta d’un procés anaeròbic, és a dir, és un procés que es produeix sense la intervenció de l’oxigen, tot i que pot enllaçar amb rutes aeròbiques.
– En la glucòlisi d’una molècula de glucosa s’originen dues molècules d’ATP i es redueixen a NADH dues molècules de NAD+, de les quals tan sols s’obtindrà energia si hi ha oxigen.
El catabolisme de les biomolècules
En el catabolisme de les biomolècules, hi ha tres etapes:
1) Transformació de les biomolècules (polisacàrids, lípids, proteïnes i àcids nucleics) en els seus monòmers principals (glucosa i altres monosacàrids, àcids grassos, glicerina, aminoàcids, bases nitrogenades, etc.). En els animals, aquesta etapa del catabolisme té lloc en el tub digestiu i els monòmers originats són distribuïts a les cèl·lules. Aquesta fase del metabolisme no aporta energia utilitzable per les cèl·lules.
2) Degradació (oxidació) dels monòmers essencials fins als metabòlits intermediaris, el més important dels quals és l’acetil-CoA. En aquesta etapa, s’emmagatzema una determinada quantitat d’energia en forma d’ATP.
3) Oxidació de l’acetil-CoA i d’altres metabòlits intermediaris, fins a CO2, H2O, NH3, amb alliberament d’energia que es fa servir per sintetitzar ATP.
Fosfoglucoisomerasa
Fosfofructoquinasa
Trifosfat-isomerasa
Gliceraldehid-3-fosfat (2 molècules)
Gliceraldehid-3-fosfat-deshidrogenasa
Fosfoglicerat-quinasa
Fosfogliceromutasa
molècules) Àcid pirúvic (2 molècules)
El balanç global i simplificat de la glucòlisi es pot resumir de la manera següent: + 2NAD+ + 2ADP + 2Pi →
C6H12O6 glucosa
2C3H4O3
àcid pirúvic
+ 2NADH + 2H+ + 2ATP
La glucòlisi inclou una seqüència de deu reaccions catalitzades per enzims específics, l’esquema de les quals és a la pàgina anterior. La fase preparatòria de la glucòlisi, les cinc primeres reaccions, inclou processos de fosforilació i fragmentació de la cadena hidrocarbonada de la glucosa fins a formar dues molècules de gliceraldehid-3-fosfat, amb consum de dues molècules d’ATP. En la segona fase, les cinc darreres reaccions, es produeixen processos d’oxidació, de transferència de grups fosfat amb síntesi d’ATP.
L’àcid pirúvic originat en la glucòlisi pot seguir dues vies catabòliques diferents: en condicions aeròbiques és oxidat a acetil-CoA, en el que es considera la primera fase de la respiració cel·lular aeròbica. Aquesta oxidació és la via metabòlica que connecta la glucòlisi amb el cicle de Krebs. En condicions anaeròbiques, l’àcid pirúvic pot transformarse en alcohol etílic (fermentació alcohòlica), en àcid làctic (fermentació làctica), etc.
En determinades condicions d’esforç muscular intens i continu, amb una insuficient aportació d’oxigen, les cèl·lules de les fibres musculars dels animals transformen anaeròbicament l’àcid pirúvic en àcid làctic i consumeixen el NADH format.
Fisiologia del múscul. Treball aeròbic i anaeròbic
Els músculs són òrgans contràctils causants dels moviments en els animals, formats per unes cèl·lules especialitzades, les fibres musculars, cilíndriques i polinucleades. En el citoplasma hi ha milers de filaments o miofibril·les amb un alt grau d’ordenació, en què es repeteix una vegada i una altra una unitat, el sarcòmer, considerat com la unitat de contracció de la fibra muscular. Cada sarcòmer és format per dos tipus de filaments interdigitats: uns de gruixuts, de miosina, i uns altres de més prims, d’actina. Durant la contracció, la longitud de cada fibra muscular disminueix pel fet que els filaments dels sarcòmers llisquen els uns damunt dels altres, amb la qual cosa produeixen l’escurçament del sarcòmer.
Els músculs oxiden diferents substrats per obtenir energia. En estat de repòs, el múscul consumeix principalment greix (acilglicèrids) i reserva la glucosa per al funcionament del sistema nerviós. El greix consumit pel metabolisme basal
L’aparició de la glucòlisi
La glucòlisi degué aparèixer en una etapa molt primitiva de l’evolució de la biosfera, ja que es desenvolupa de manera idèntica en organismes tan allunyats evolutivament com ara els bacteris, les plantes i els animals. S’accepta que els primers organismes de la Terra eren organoheteròtrofs que van desenvolupar la glucòlisi com a manera d’obtenir energia aprofitant l’abundància de matèria orgànica i la manca d’oxigen lliure.
Teixit muscular estriat vist a través del microscopi òptic.
no és necessàriament de la zona del múscul actiu, sinó que pot provenir d’altres zones per mitjà de la sang. Fins i tot les persones més magres disposen d’un mínim de greix corporal del 5 o el 10%.
En la realització d’exercicis lleugers, la situació es manté de manera semblant, però en incrementar-se la intensitat de l’esforç, el múscul incorpora més quantitat de glúcids com a combustible, a més dels greixos.
Quan l’esforç és molt intens, gairebé tota l’energia consumida pel múscul prové de l’oxidació aeròbica o anaeròbica de glúcids. En cas de necessitat, com ara exercicis molt llargs i sense consumir aliment, el múscul també pot consumir aminoàcids abocats al sistema circulatori després que hagin estat transformats en glucosa en el fetge mitjançant la gluconeogènesi.
En condicions extremes, quan el subministrament d’oxigen ja no es pot incrementar, només els glúcids poden aportar energia en condicions anaeròbiques.
En aquestes condicions, quan els músculs estan treballant per sobre de les seves possibilitats, s’acumula un excés de lactat (àcid làctic) que no pot ser incorporat en el cicle de Krebs. Bona part d’aquest lactat s’aboca a la circulació sanguínia i els enzims hepàtics el reconverteixen en glucosa (gluconeogènesi), que torna a la circulació per al consum dels músculs i del cervell.
Els cruiximents, caracteritzats per forts dolors musculars, s’originen per la formació de cristalls de lactat al múscul, quan, durant un esforç intens i continuat, aquest no rep prou oxigen i la glucosa és oxidada anaeròbicament, en allò que com hem vist és una via d’emergència per obtenir una mica més d’energia.
La rampa muscular consisteix en la manca de relaxació muscular a causa d’un esgotament de l’ATP.
La fermentació és una via metabòlica de degradació parcial, mitjançant la qual nombrosos microorganismes, entre els quals hi ha sobretot diversos grups de bacteris i de llevats, obtenen l’energia que necessiten. Aquest procés també el porten a terme les cèl·lules musculars dels animals quan tenen una aportació d’oxigen insuficient i han de mantenir un treball continuat.
La fermentació consisteix en un catabolisme incomplet de diferents substrats (glucosa, lactosa, maltosa, etc.), i dóna lloc a diferents productes finals orgànics (alcohol etílic, àcid làctic, àcid acètic, etc.), que encara conserven part de l’energia que emmagatzemaven. Aquests tipus de vies catabòliques rendeixen molta menys energia que la respiració cel·lular aeròbica.
Des d’una perspectiva bioquímica, per fermentació s’entén qualsevol procés metabòlic d’obtenció d’energia en forma d’ATP en el qual tant el donant com
el receptor d’electrons són compostos orgànics i on l’estat d’oxidació del producte final no és gaire diferent del dels productes inicials. Els productes finals de les fermentacions acostumen a ser alcohols (etanol, etc.) o àcids orgànics (làctic, acètic, etc.). Quan els substrats que fermenten no són els glúcids, sinó els aminoàcids de les proteïnes, es produeixen substàncies molt pestilents (com la cadaverina o l’indol).
Aquest és el procés de la putrefacció o fermentació pútrida que té, tanmateix, una gran importància ecològica.
Un organisme pot produir diverses fermentacions. A la natura, la matèria orgànica sol transformar-se per mitjà d’una mescla de fermentacions produïdes per diversos microorganismes, sovint amb canvis indesitjats (agror, pudor, etc.) que la malmeten com a aliment. En canvi, les fermentacions alimentàries i industrials són processos en els quals s’afavoreix una fermentació determinada, al mateix temps que se n’impedeixen altres per obtenir una transformació concreta.
Les fermentacions, que sovint –però no en tots els casos– són processos anaeròbics, es designen pel producte final més abundant. Així, es parla de fermentació alcohòlica, el producte final de la qual és l’alcohol etílic; de fermentació làctica, que produeix àcid làctic; de fermentació acètica, que origina àcid acètic, etc. Aquesta darrera és un exemple de fermentació aeròbica.
Les fermentacions són molt importants per a l’ésser humà, ja que són processos a partir dels quals s’obtenen productes de gran consum, com ara el pa, els iogurts, els formatges, el vi, la cervesa, etc.
Nom Agent
Alcohòlica Llevats del gènere Saccharomyces
Làctica Bacteris dels gèneres
Streptococcus, Lactobacillus, Thermobacterium, etc.
Acètica Bacteris del gènere Acetobacter (en presència de O2)
Butírica Bacteris del gènere Clostridium
Substrats
Glucosa, fructosa, etc.
Lactosa
Productes finals
Alcohol etílic i CO2
a) L’aspecte i el sabor dels formatges anomenats blaus són deguts a la fermentació làctica i a les fermentacions produïdes per floridures del gènere Penicillium.
Importància industrial Tipus de processos
Obtenció de pa i begudes alcohòliques
Anaeròbic
Àcid làctic Obtenció de formatge i iogurt
Anaeròbic
Alcohol etílic
Àcid acètic Obtenció de vinagre
Aeròbic
Cel·lulosa i midó
Àcid butíric Intervenció en la descomposició dels vegetals del sòl
Anaeròbic
b) Cèl·lules del llevat de cervesa (Saccharomyces cerevisiae) vistes a través del microscopi òptic (1000x).
El vi
El vi és una beguda alcohòlica que s’obté per fermentació del suc del raïm (most). Els sucres del most són transformats en alcohol etílic i gas carbònic per acció dels llevats Saccharomycescerevisiae (varietats ellipsoideus i oviformis, principalment), que es troben de manera natural en la pell del raïm. La producció de vi, o vinificació, ha estat durant molts segles un procés empíric, fins que al segle XIX Louis Pasteur va demostrar que els llevats són els causants de la fermentació.
Els mitocondris
Els mitocondris són orgànuls cel·lulars esfèrics o allargats on es produeix l’oxidació dels metabòlits amb alliberament d’energia que serveix per sintetitzar l’àcid adenosinatrifosfòric (ATP). Totes les cèl·lules eucariotes en tenen.
Un mitocondri és format per una doble membrana que envolta la matriu, formada per aminoàcids, sistemes enzimàtics, ADP, ATP, etc. La part interna de la membrana presenta nombroses invaginacions cap a l’interior, anomenades crestes. Els mitocondris contenen un patrimoni genètic propi, amb ADN, ARN i ribosomes, amb el qual sintetitzen una part de les proteïnes que necessiten.
Els mitocondris s’originen per divisió de mitocondris predecessors, a un ritme diferent del de la divisió cel·lular. Repliquen el seu ADN, que transmeten als mitocondris fills, i tenen, per tant, la seva continuïtat genètica.
És per tot plegat que hom pot pensar que els mitocondris probablement són descendents modificats de cèl·lules procariotes aeròbies que, juntament amb altres formes «bacterianes», van originar les cèl·lules eucariotes per evolució d’una simbiosi primitiva.
Secció transversal d’un mitocondri.
1.2. El cicle de Krebs
El cicle de Krebs és l’etapa final del catabolisme aeròbic dels glúcids, els àcids grassos i els aminoàcids. Aquest procés està acoblat a la cadena respiratòria o cadena transportadora d’electrons, i és l’agent de la major part de la producció d’energia en la cèl·lula.
El cicle de Krebs (també anomenat cicle de l’àcid cítric o dels àcids tricarboxílics) inclou vuit reaccions catalitzades per enzims que degraden l’acetil-CoA a CO2, amb alliberament d’àtoms d’hidrogen que són transferits a la cadena transportadora d’electrons.
Els aspectes que cal remarcar del cicle de Krebs són els següents: – És la principal via catabòlica d’oxidació dels glúcids, dels àcids grassos i dels aminoàcids; en les reaccions que inclou no intervé directament l’oxigen molecular.
– El substrat inicial és l’acetil-CoA, originat a partir de l’àcid pirúvic procedent de la glucòlisi.
– Les vuit reaccions del cicle de Krebs es produeixen de manera cíclica i contínua. En cada volta del cicle, un grup acetil és oxidat a dues molècules de CO2 amb producció de quatre parells d’àtoms d’hidrogen. Tres d’aquests parells reduiran tres molècules de NAD+ a NADH, mentre que l’altre reduirà una molècula de FAD a FADH2.
– Es desenvolupa en tots els organismes aerobis: en els procariotes es produeix en el citoplasma, mentre que en els eucariotes té lloc a l’interior dels mitocondris.
– Alguns metabòlits intermediaris del cicle de Krebs són necessaris per a la biosíntesi de diverses biomolècules importants, com ara la glucosa, els aminoàcids, els nucleòtids, etc.
Producció d’ATPen el catabolisme de la glucosa
NADHo FADH2 formats en els diversos processos del catabolisme de la glucosa
Molècules d’ATP formades per cada molècula de glucosa
Glucòlisi:glucosa → àcid pirúvic
Transformació de l’àcid pirúvic en acetil-CoA
Cicle de Krebs → CO2
Fosforilació oxidativa
2 NADHde la glucòlisi
2 NADHde la transformació de l’àcid pirúvic
6 NADHdel cicle de Krebs
2 FADH2 del cicle de Krebs
Àcid màlic
COOH HO COOH CH2 CH
Àcid fumàric
COOH COOH CH CH
Àcid succínic
COOH CH2 CH2
cítric
oxalacètic Àcid cis-aconític
COOH COOH CH2 C COOH CH2 HO COOH COOH CH C COOH CH2
Àcid isocítric
α-oxoglutàric
oxalosuccínic
Esquema general de la respiració cel·lular aeròbica que mostra quines fases es desenvolupen en el mitocondri i quines etapes prèvies tenen lloc en el citosol.
Proteïnes
Aminoàcids
Polisacàrids Lípids
Monosacàrids Àcids grassos
Glucòlisi
Àcid pirúvic
Acetil-CoA
L’acetil-CoA és un metabòlit intermediari fonamental, ja que és el punt de confluència dels catabolismes dels glúcids (glucòlisi), dels lípids (β-oxidació) i de les proteïnes (desaminació i transaminació). És el substrat a partir del qual s’inicia el cicle de Krebs. L’acetil-CoA és una molècula essencial en diverses rutes biosintètiques, com ara la que origina els esteroides (entre els quals hi ha el colesterol), els àcids grassos, diferents aminoàcids i nucleòtids. La seva fórmula és la següent: CH3–CO–SCoA.
Mitocondri d’una cèl·lula cardíaca vist al microscopi electrònic de transmissió (en fals color).
Catabolisme de la glucosa. Comparació de la fermentació i la respiració.
Transport d’electrons. Fosforilació oxidativa
Treball cel·lular
Fermentació
Respiració cel·lular
1.3. Transport electrònic i fosforilació oxidativa
Totes les diferents etapes enzimàtiques del catabolisme o degradació de les biomolècules (piruvat procedent del catabolisme dels glúcids, aminoàcids i àcids grassos) convergeixen cap a la fase final de la respiració cel·lular, amb els processos coneguts com a transport electrònic i fosforilació oxidativa.
Aquests processos finals de les vies catabòliques es desenvolupen en els mitocondris, concretament en la matriu i en la membrana interna mitocondrial. Són els únics processos catabòlics en els quals intervé oxigen molecular i s’allibera energia, amb la qual se sintetitzen molècules de trifosfat d’adenosina (ATP).
Durant la formació de l’acetil-CoA, i també després, en les reaccions del cicle de Krebs catalitzades pels enzims deshidrogenases, s’alliberen parells d’àtoms d’hidrogen que són captats pel NAD+ i per altres coenzims i que donen lloc a NADH.
Els àtoms d’hidrogen d’aquest coenzim cedeixen o transfereixen els seus electrons (e–) a la cadena respiratòria transportadora d’electrons, formada per un grup de proteïnes localitzades a la membrana interna dels mitocondris. Les proteïnes transportadores (NADH-deshidrogenasa, ubiquinona, citocrom a, citocrom b i citocromooxidasa) es van transferint els electrons les unes a les altres, fins a l’oxigen, l’acceptor final dels electrons, que es redueix i forma aigua.
La transferència electrònica d’un transportador fins al següent és una reacció d’oxidació-reducció, en la qual intervenen dues molècules: la que cedeix els electrons és l’agent reductor i la que els accepta és l’agent oxidant. En cada transferència, els electrons perden part de la seva energia. En perdre electrons, els àtoms d’hidrogen es transformen en protons (H+). La transferència d’electrons està acoblada a un bombeig de protons a través de la membrana mitocondrial interna. Es crea així una diferència de concentració de protons (és a dir, de pH, o gradient de protons, semblant al que existeix entre els borns d’una bateria) entre la matriu mitocondrial i l’espai intermembranós.
El gradient de protons és la font d’energia utilitzada en la fosforilació de l’ADP per formar ATP. Cada parell d’electrons en trànsit per la cadena respiratòria fins a l’oxigen desencadena la síntesi de tres molècules d’ATP a partir d’ADP i Pi. Aquestes tres molècules s’originen en uns indrets concrets de la cadena en els quals hi ha suficient energia disponible i que s’anomenen indrets de conservació de l’energia
Aquestes reaccions són catalitzades per enzims del grup de les ATP-ases, localitzats sobre la membrana mitocondrial interna.
La transferència electrònica des d’una molècula transportadora fins a la següent és una reacció d’oxidació-reducció. La molècula que cedeix els electrons és l’agent reductor i la que els accepta és l’agent oxidant.
Quan un electró carregat d’energia és transferit al llarg de la cadena de transport, una part de l’energia és utilitzada per impulsar l’acció de tres complexos d’enzims que bomben H+ cap a l’espai intermembranós, a l’exterior de la matriu.
Aquest gradient de protons impulsa els H+ a tornar a entrar a la matriu a través de l’ATP-sintetasa, un enzim (complex de proteïnes transmembrana) que utilitza l’energia del flux de protons per sintetitzar ATP a partir d’ADP i Pi
Origen dels parells d’àtoms d’hidrogen generats en el cicle de Krebs i esquema resumit de la cadena de transportadors d’electrons i de la fosforilació oxidativa.
Fumarat Malat
Acetil-CoA
NADH-deshidrogenasa
Ubiquinona
Citocrom b
Citocrom c1
Citocrom c
Isocitrat
8.1. Copia la taula de sota i indica quins monòmers s’originen en la primera fase del catabolisme dels principis immediats.
Principis immediats
Proteïnes
Glúcids
Lípids
Àcids nucleics
Monòmers
8.2. Copia aquest quadre comparatiu entre la fermentació i la respiració i completa’l.
Fermentació Respiració
Substrat inicial
Producte final
Agent oxidant (acceptor final d’electrons)
Rendiment energètic (amb relació al substrat)
8.3. Indica en quin ordre es produeixen els següents processos del catabolisme de la glucosa: transport d’electrons, origen de l’acetilCoA, glucòlisi i cicle de Krebs.
8.4. Copia les frases següents i escriu al costat de cadascuna si és certa o falsa:
a) En la fermentació, l’acceptor d’electrons és l’oxigen molecular.
b) El catabolisme de la glucosa inclou la glucòlisi i la respiració cel·lular.
c) En la glucòlisi, la molècula de glucosa s’escindeix en dues molècules de glicerina.
d) El producte final de la glucòlisi és l’acetil-CoA.
e) La fermentació és una degradació incompleta de diferents substrats.
f) En la glucòlisi, a partir d’una molècula de glucosa, se n’obtenen quatre d’ATP.
g) La fermentació és un procés catabòlic exclusiu d’alguns grups de bacteris.
h) La glucòlisi es produeix en absència d’oxigen.
i) El cicle de Krebs es desenvolupa a partir de l’acetil-CoA.
Les fermentacions són vies metabòliques de degradació parcial dels substrats i no són necessàriament totes anaeròbiques. Es distingeixen dos tipus de processos catabòlics:
1) De respiració, quan es produeix la degradació total de les biomolècules a CO2, H2O i NH3, amb l’alliberament de tota l’energia que emmagatzemaven en els seus enllaços químics. Quan l’acceptor final d’electrons en aquests processos d’oxidació és l’oxigen molecular, es diu que la respiració és aeròbica.
2) De fermentació, quan es produeix la degradació parcial de les biomolècules amb formació d’altres molècules (alcohol etílic, àcid làctic, etc.) que encara conserven energia. L’acceptor final dels electrons en els processos d’oxidació fermentatius no és l’oxigen molecular, sinó un altre compost orgànic.
Els lípids o greixos són biomolècules formades per C, H i O, que sovint contenen P, N i S, d’elevat pes molecular, insolubles en aigua i solubles en dissolvents orgànics. Els lípids constitueixen la principal reserva energètica dels animals. Alguns d’aquests lípids, com ara els fosfolípids i el colesterol, són components essencials de les membranes cel·lulars, mentre que d’altres tenen funcions catalítiques i reguladores. Els lípids més abundants són els triglicèrids, constituïts per tres molècules d’àcid gras enllaçades a una molècula de glicerol. El colesterol pertany al grup dels esteroides (lípids insaponificables derivats de l’esterà, un hidrocarbur cíclic), s’ingereix amb la dieta o es pot originar en el fetge, i es troba en el plasma sanguini en forma de lipoproteïnes. L’excés de colesterol en el plasma sanguini és un important factor de risc de l’aterosclerosi, la qual consisteix en la pèrdua d’elasticitat de les artèries i en la reducció del seu diàmetre intern.
8.5. Tenint en compte que la producció del vi es basa en la transformació del most que resulta de triturar i premsar el raïm, respon a les preguntes següents:
a) Quin procés metabòlic és l’agent de l’obtenció del vi?
b) Quins productes finals s’originen? Escriu-ne la reacció química completa.
c) Quins organismes són causants d’aquest procés?
d) Es tracta d’un procés aeròbic o anaeròbic?
e) Per què cal evitar que el vi en formació es barregi amb l’aire? Té alguna cosa a veure amb el procés de la fermentació?
8.6. Copia l’esquema del catabolisme de la glucosa, completa’l amb els termes adequats i indica en quin punt de la cèl·lula es realitzen les diverses fases del procés.
Glucosa →
Acetil-CoA
Cadena respiratòria
Els lípids, especialment els triglicèrids (o triacilglicèrids), tenen un paper essencial en la producció i l’emmagatzematge de l’energia en els animals. Amb un contingut en energia de més de 9 kcal/g, molt superior al contingut energètic dels glúcids (4,2 kcal/g), els triacilglicèrids s’acumulen en forma de petites gotes en el citoplasma de moltes cèl·lules, especialment en les que formen el teixit adipós de la base de la pell de determinades zones del cos, com ara l’abdomen, els malucs, etc.
En els animals, la primera etapa del catabolisme dels lípids es produeix a l’intestí prim mitjançant l’acció de les sals biliars, que originades al fetge emulsionen les gotes de lípids a petites gotes, i de les lipases i esterases, enzims pancreàtics, que hidrolitzen els triacilglicèrids a àcids grassos i glicerina (o glicerol).
Mitjançant la limfa i la sang, aquests dos catabòlits són transportats al fetge i als teixits. En el teixit adipós, els àcids grassos són esterificats amb glicerina i emmagatzemats en forma de triacilglicèrids. En altres teixits, com ara el múscul esquelètic, si l’aportació de glucosa és suficient per cobrir les necessitats energètiques, els àcids grassos són emmagatzemats en forma de petites gotes.
L’oxidació dels àcids grassos, via catabòlica anomenada β-oxidació o hèlix de Lynen, s’inicia en el citosol i finalitza a l’interior del mitocondri. En el citosol, l’àcid gras es combina amb el coenzim A i forma l’acil-CoA, metabòlit que penetra en el mitocondri gràcies a la presència del transportador carnitina.
Activació de l’àcid gras que es combina amb el coenzim A. S’esdevé en el citosol
Penetració de l’acil-CoA en el mitocondri
Mitocondri
CoA–SH
R — CH2 — CH2 — COOH αβ Àcid gras (amb n àtoms de carboni)
ATP
ADP
CoA–SH
R — CH2 — CH2 — CO — S — CoA
Acil-CoA gras
Oxidació FAD FADH2
Acil-CoA β-insaturat
Hidratació H2O
— CHOH — CH2 — CO — S —
NAD NADH2 Oxidació
Sintetases de l’acil-CoA
Carnitina
Carnitinotransferasa
Acil-CoA-deshidrogenasa
Catabolisme dels àcids grassos amb un nombre parell d’àtoms de carboni.
Escissió
Acil-CoA gras (amb n – 2 àtoms de carboni)
La β-oxidació d’un àcid gras amb un nombre parell d’àtoms de carboni (n és el nombre de parells d’àtoms de carboni) es repetirà n – 1 vegades amb la producció de n molècules d’acetil-CoA, n – 1 molècules de NADH2 i n – 1 molècules de FADH2. Així, la β-oxidació de l’àcid palmític amb 16 àtoms de carboni es repetirà set vegades amb la producció de vuit molècules d’acetil-CoA, set molècules de NADH2 i set molècules de FADH2
La β-oxidació dels àcids grassos, que produeix una gran quantitat d’energia, està acoblada al cicle de Krebs i a la cadena de transport electrònic i fosforilació oxidativa.
Diferències entre el catabolisme (β-oxidació) i l’anabolisme d’un àcid gras amb un nombre parell d’àtoms de carboni
Catabolisme
Lloc cel·lular on es produeix
Transportador dels grups acil
Forma en la qual participen les unitats de dos àtoms de carboni
Donador o acceptor d’electrons
Anabolisme
Mitocondri Citosol
Coenzim A ACP, proteïna transportadora d’acils
Acetil-CoA
Malonil-CoA
FAD, NAD+ NADPH
Participació del CO2 No Sí
Balanç energètic del catabolisme de l’àcid palmític per β-oxidació.
Aquest procés degradatiu dels àcids grassos té lloc a l’interior del mitocondri. A l’estroma del mitocondri, la cadena hidrocarbonada de l’àcid gras, que experimenta l’oxidació del carboni β, perd successius fragments de dos àtoms de carboni (grups acil), començant per l’extrem carboxílic i acabant per l’altre extrem de la cadena.
El resultat d’aquestes reaccions és la formació de molècules d’acetil-CoA, que s’incorporen al cicle de Krebs, i, per tant, de nucleòtids reduïts (NADH2 i FADH2), que intervindran (fosforilació oxidativa) en la síntesi d’ATP.
El catabolisme de la glicerina consisteix en una fosforilació seguida d’una deshidrogenació per originar dihidroxicetona-fosfat, la qual, per isomerització, donarà lloc a gliceraldehid3-fosfat, catabòlit intermedi del catabolisme de la glucosa.
El fet que els grups acil (en forma de molècules d’acetil-CoA) s’incorporin al cicle de Krebs representa en la pràctica una interconnexió funcional entre les vies degradatives de les diferents biomolècules i, per tant, dels recursos energètics de les cèl·lules.
oxidativa
Catabolisme de la glicerina.
Les proteïnes ingerides en la dieta pels animals són la font dels aminoàcids. En el tub digestiu, els enzims del grup de les proteases (pepsina, tripsina, quimotripsina) trenquen els enllaços peptídics de les proteïnes i subministren els aminoàcids, que són distribuïts a les cèl·lules. Molts aminoàcids seran utilitzats en els ribosomes, on són engalzats per originar noves proteïnes.
El catabolisme dels aminoàcids té lloc en els mitocondris i inclou les fases següents:
1) Eliminació del grup amino dels aminoàcids mitjançant dos tipus de reaccions, la transaminació i la desaminació. La transaminació consisteix, bàsicament, en la transferència dels grups amino dels aminoàcids a cetoàcids (àcids orgànics amb un o més grups cetònics). En aquestes reaccions, intervenen enzims del grup de les transaminases,
Trencament dels enllaços peptídics per enzims com ara la tripsina, la quimotripsina, etc.
Síntesi de noves proteïnes en els ribosomes i, en proporció menor, en els cloroplasts i en els mitocondris.
Síntesi de bases nitrogenades Diversos productes intermedis
Esquema global del metabolisme de les proteïnes.
Els aminoàcids són compostos orgànics que tenen, com a mínim, un grup amino bàsic (–NH2) i un grup carboxil (–COOH). Els aminoàcids poden unir-se entre si per formar cadenes mitjançant un tipus d’enllaç molt rígid, anomenat enllaç peptídic.
Totes les proteïnes dels organismes són formades per combinacions de 20 aminoàcids diferents. Aquests aminoàcids es diferencien entre si per la naturalesa química de les cadenes laterals.
que catalitzen aquests processos de transferència de grups. La desaminació oxidativa es desenvolupa a la matriu mitocondrial, requereix l’aportació de NAD i és catalitzada per enzims del grup de les deshidrogenases.
2) Una part dels grups amino dels aminoàcids són transformats en productes d’excreció, com ara amoníac, àcid úric i urea.
3) El destí de les cadenes hidrocarbonades és específic de cada aminoàcid i donen sempre metabòlits que s’incorporen al cicle de Krebs fins a la seva oxidació a CO2 i energia, com ara l’àcid pirúvic, l’acetil-CoA, l’àcid glutàmic, l’àcid fumàric i l’àcid oxalacètic. Algunes d’aquestes cadenes hidrocarbonades intervenen en la biosíntesi de glucosa (gluconeogènesi) i d’àcids grassos.
Malgrat que la funció bàsica de les proteïnes no és la producció d’energia, en determinades condicions poden ser utilitzades com a combustible cel·lular.
Fenilalanina
Tirosina
Leucina
Lisina
Triptòfan
Àcid acetoacetil-CoA
Àcid aspàrtic
Àcid oxalacètic
Àcid màlic
Àcid fumàric
Àcid succínic
Alanina
Treonina
Glicina
Serina
Cisteïna
Àcid pirúvic
Àcid cítric
Àcid isocítric
Àcid oxoglutàric
Rutes catabòliques de les cadenes hidrocarbonades dels 20 aminoàcids de les proteïnes.
El catabolisme dels àcids nucleics comporta la degradació de tots els components dels nucleòtids: les pentoses (monosacàrids), les molècules d’àcid fosfòric i les bases nitrogenades, tant les puríniques com les pirimidíniques. Aquest catabolisme comença al tub digestiu. Efectivament, la digestió dels àcids nucleics dóna lloc primerament a nucleòtids i després als components d’aquests nucleòtids: pentoses (ribosa i 2-desoxi-D-ribosa), grups fosfat i bases nitrogenades (adenina, guanina, timina, citosina i uracil).
Les pentoses segueixen les vies catabòliques dels glúcids en els processos cel·lulars d’obtenció d’energia o intervenen en la biosíntesi de nous nucleòtids, a partir dels quals es poden formar els àcids nucleics.
Els grups fosfat no experimenten cap transformació i poden excretar-se mitjançant l’orina, o bé poden ser utilitzats en els processos de fosforilació (com ara la síntesi d’ATP) i en la síntesi de nous nucleòtids.
El catabolisme de les bases nitrogenades i dels aminoàcids genera excedents nitrogenats que si no són reutilitzats són tòxics i han de ser eliminats per l’organisme.
Les bases nitrogenades es fan servir en la biosíntesi de nous nucleòtids, o bé es catabolitzen a productes d’excreció, com ara àcid úric, en el cas de les bases puríniques (adenina i guanina), o amoníaci urea, en el de les bases pirimidíniques (timina, citosina i uracil).
Catabolisme dels àcids nucleics.
Orina
Biosíntesi
Catabolisme glucídic
Biosíntesi de nucleòtids
Puríniques Àcid úric
Amoníac i urea
A vegades, el catabolisme produeix compostos tòxics que cal eliminar d’una manera o altra. Aquest és el cas dels compostos nitrogenats procedents de la degradació dels aminoàcids i de les bases nitrogenades.
8.7. Respon a les preguntes següents referents al catabolisme dels àcids grassos, components fonamentals de molts lípids, com ara els triglicèrids:
a) Quin nom rep el catabolisme dels àcids grassos?
b) On es produeix aquest catabolisme?
c) Quina funció desenvolupa en aquest procés el coenzim A?
d) Quin producte final s’origina en el catabolisme dels àcids grassos?
e) Un àcid gras freqüent en els triglicèrids és l’àcid palmític, de 16àtoms de carboni. Si en el seu catabolisme calen set β-oxidacions, quantes molècules d’ATP s’originen?
8.8. Explica quines funcions desenvolupen en la primera fase del catabolisme dels lípids les sals biliars i els enzims del grup de les lipases. Quins monòmers s’originen durant aquesta primera fase?
8.9. Quins enzims trenquen els enllaços peptídics de les proteïnes? Quins monòmers s’originen mitjançant l’acció d’aquests enzims?
8.10. Quins productes d’excreció s’originen durant el catabolisme dels aminoàcids?
8.11. Indica els monòmers que s’originen en la primera fase del catabolisme de l’ARN.
8.12. Quins metabòlits s’originen en el catabolisme del glicerol?
8.13. Digues a quin metabòlit del cicle de Krebs s’incorporen, per ser degradades, les cadenes hidrocarbonades dels aminoàcids següents: alanina, tirosina, prolina i lisina.
8.14. Tenint en compte que la glucòlisi és l’etapa inicial del catabolisme de la glucosa, fes les activitats següents:
a)Copia la primera reacció de la glucòlisi i completa-la amb l’enzim que la catalitza i el producte final que s’origina: glucosa → …
b)Digues si aquesta primera reacció allibera energia o en consumeix.
c)Digues també si la glucòlisi és un procés aeròbic o anaeròbic.
d)Esmenta tres enzims que catalitzen reaccions de la glucòlisi.
8.15. Busca en llibres especialitzats, enciclopèdies, publicacions tècniques, articles, Internet, etc. informació sobre els llevats i, a continuació, contesta a les preguntes següents:
a)A quin grup d’organismes pertanyen? Quina categoria taxonòmica té aquest grup?
b)Els llevats, són organismes unicel·lulars o pluricel·lulars?
c)Els llevats, són organismes autòtrofs o heteròtrofs?
d)Quina és la via metabòlica que fan servir per obtenir energia?
e)Quin és el sistema més comú de reproducció dels llevats?
f)Fes un resum de quines són les principals aplicacions dels llevats.
8.16. Copia el quadre de que hi ha a continuació, el qual fa referència al catabolisme de la glucosa en les vies metabòliques que hi consten, i després completa’l.
8.17. Observa l’esquema del cicle de Krebs que hi ha a la pàgina 286 i contesta a les preguntes següents:
a)De quina mena de procés metabòlic es tracta, anabòlic o catabòlic?
b)Com es diu el metabòlit a partir del qual s’inicia aquest procés?
c)En quin orgànul cel·lular es desenvolupa?
8.18. Completa cada una de les frases següents amb la resposta o respostes correctes:
• La cadena respiratòria…
a) …és la darrera fase de la respiració aeròbica; b) …té lloc en els ribosomes; c) …necessita l’aportació d’ATP.
• En la fermentació alcohòlica, l’acceptor final d’electrons és…
a) …l’oxigen molecular; b) …l’hidrogen; c) …un compost orgànic.
• L’acetilcoenzim A és…
a) …un enzim; b) …el metabòlit en el qual convergeixen la major part de les vies catabòliques; c)…un agent oxidant.
• El substrat inicial del cicle de Krebs és…
a) …la glucosa; b) …l’àcid làctic; c) …l’acetilcoenzim A.
• El producte final de la glucòlisi és…
a) …l’àcid làctic; b) …el piruvat; c) …el CO2.
• La miosina és…
a) …un enzim; b) …un metabòlit intermediari essencial; c) …una de les proteïnes de la fibra muscular.
• Les bases nitrogenades s’originen…
a) …en el metabolisme de la cel·lulosa; b) …en la hidròlisi dels àcids nucleics; c) …en la fosforilació oxidativa.
Producte final
Molècules d’ATPoriginades
És necessari l’oxigen molecular?
Intensitat del treball
B.Marxa (caminar lentament)
C.Marxa (caminar de pressa)
D.Cursa (ritme suau)
E.Cursa (ritme mitjà)
F.Cursa (ritme intens)
G.Cursa (ritme molt intens)
H.Cursa (màxim esforç)
8.19. Les cèl·lules musculars dels éssers humans poden obtenir energia de forma aeròbica i anaeròbica. Això es posa de manifest en una prova d’esforç quan s’augmenta deforma progressiva l’activitat física de la persona a la qual es fa el test. Les dades del quadre que hi ha a sobre corresponen a una d’aquestes proves d’esforç.
a) Copia la taula que hi ha al costat del quadre esmentat anteriorment, traspassa-hi les dades i traça els gràfics corresponents.
b) Si en una cursa a ritme suau prop del 85% de l’energia necessària s’obté de la degradació aeròbica de les biomolècules energètiques, i en canvi en una cursa de màxim esforç el 95% de l’energia prové del catabolisme anaeròbic, com s’aconsegueix incrementar la intensitat de l’esforç sense augmentar el consum d’oxigen en les etapes finals del gràfic?
8.20. La il·lustració que hi ha a la dreta mostra un esquema general de les vies metabòliques d’una cèl·lula animal. Digues el nom de cadascuna de les vies marcades amb un número i indica si són anabòliques o catabòliques.
8.21. Copia aquest text i omple els espais buits amb les paraules següents: fosforilació, ruptura, catabolisme, hidrocarbonades, CO2, productes, principis immediats, calor, parcial, respiració, energia i síntesi. El … inclou el conjunt de reaccions químiques que degraden els … amb producció neta d’… . Aquestes reaccions són de … de les cadenes… de les biomolècules, d’oxidació-reducció, de…, etc. L’energia alliberada en el catabolisme es fa servir en la … d’ATP o s’allibera en forma de… .
Segons la intensitat del catabolisme, es distingeixen dos tipus de processos: de …, quan es produeix la degradació total de les biomolècules a … i aigua, i de fermentació, quan es produeix la degradació … de les biomolècules que dóna lloc a … finals que encara emmagatzemen energia.
8.22. Copia l’esquema següent, que correspon a les principals vies catabòliques dels glúcids i els lípids, i completa’l.
Catabolisme complet de la glucosa que allibera tota l’energia.
Gairebé sempre és un procés anaeròbic.
Transport electrònic i fosforilació oxidativa
Cicle de Krebs
La respiració cel·lular n’és la segona etapa, amb oxigen.
1. Copia aquest quadre sobre els metabòlits intermediaris i completa’l en cada cas amb el substrat inicial i la via metabòlica a partir de la qual s’originen.
Metabòlit Substrat inicial Via metabòlica
Ribosa
Àcid úric
NH3
Glucosa-6-fosfat
Acil-CoA gras
Base nitrogenada
Glicerina
Gliceraldehid-3-fosfat
2. Copia el text següent i omple els espais buits amb els termes següents: transportadores, eucariotes, matriu, membrana, síntesi, cadena respiratòria, proteïnes i metabòlits.
Els mitocondris són orgànuls que es troben en totes les cèl·lules … . Són formats per una doble … i per una zona interna, la …. La membrana interna conté tres tipus de …: unes són … i regulen el pas dels … a l’interior del mitocondri; unes altres, que constitueixen la …, catalitzen reaccions d’oxidació; un tercer tipus constitueix el complex ATPsintetasa, que catalitza la … d’ATP.
3. Quins metabòlits intermediaris s’originen al final de les cinc primeres reaccions de la glucòlisi (fase preparatòria)? Esmenta el nom de dues d’aquestes reaccions i dels enzims que les catalitzen.
4. Escriu el balanç simplificat de la glucòlisi.
5. Explica el significat de la frase següent: «La fermentació consisteix en el catabolisme incomplet de diferents substrats».
6. Explica què signifiquen, en el camp de la biologia, els termes següents: aerobi, anaerobi, aeròbic i anaeròbic
7. En el catabolisme dels aminoàcids s’origina amoníac. Explica quins camins pot seguir aquesta substància.
8. Explica què és l’acetil-CoA i indica el nom de tres vies metabòliques en les quals intervé aquesta substància i el de tres biomolècules a partir de les quals es forma.
9. Esmenta el nom de quatre substàncies que acceleren el catabolisme i que es podrien utilitzar, de forma il·legal, per fer augmentar el rendiment en una competició esportiva. Quins efectes poden tenir aquestes substàncies sobre l’organisme de l’ésser humà?
10. Indica en quins processos metabòlics intervé cada un dels productes següents:
– amoníac
– glicerina
– àcid làctic
– sals biliars
– proteases
– ATP-sintetasa
– cetoàcid
– transaminasa
– acetil-CoA
Objectius
a) Experimentació de les variables que influeixen sobre un procés enzimàtic.
b) Recollida, presentació i interpretació de dades d’observació i experimentació.
c) Observació microscòpica de la morfologia i biologia dels llevats de la fermentació alcohòlica.
Material
– Sacarímetres d’Einhorn.
– Glucosa.
– Llevat de pa fresc.
– Microscopi, portaobjectes i cobreobjectes.
a)Observació de la fermentació alcohòlica per part del llevat de cervesa i l’alliberament de gas carbònic
Posa una part de la dissolució de glucosa i llevat en un tub d’assaig i tapa’l amb un globus. Deixa’l en un lloc calent (per exemple, sota la llum d’una bombeta) i estudia el que passa.
Si es disposa de diversos sacarímetres, és convenient que cada observador pugui seguir l’evolució de diversos aparells situats en indrets diferents: a les fosques, en un lloc fred, en un indret càlid, etc.
Omple el sacarímetre (inclinat) amb la dissolució de llevat i glucosa. Comprova que la columna vertical graduada quedi ben plena de dissolució.
Observa el despreniment de bombolles de gas carbònic (CO2) que s’acumulen a l’extrem superior del sacarímetre i que fan baixar, en pressionar-lo, el nivell de la dissolució. Comprova la variació de l’alliberament del gas a intervals de temps regulars (per exemple, cada 5 minuts).
Anota els valors observats en l’escala de l’aparell i representa’ls en un gràfic. Després, contesta a les preguntes següents:
a) Què passa a l’extrem del sacarímetre?
b) Quina n’és la causa?
c) Hi ha variació entre els sacarímetres?
d) Quina mena de gràfics s’obtenen? Explica els motius de les variacions observades.
e) Per què no hi ha despreniment de forma immediata?
f) Com evoluciona la corba?
g) Com podries estudiar si els llevats presenten tolerància a l’alcohol?
h) Quina influència exerceix la temperatura sobre la fermentació?
Després d’haver efectuat l’observació anterior, agafa una gota del suc amb llevats i posa-la entre el portaobjectes i el cobreobjectes. Observa-la al microscopi amb un bon augment i dibuixa les cèl·lules que hi veus.
a)Es veu el fenomen de la gemmació?
b)En què consisteix?
c)Quin aspecte tenen les cèl·lules implicades?
1.Tipus i etapes de la fotosíntesi
2.Els pigments fotosintètics
3.La fase fotoquímica. Flux electrònic, formació del NADPH i fotofosforilació
4.La fase biosintètica. La fixació del CO2 i el cicle de Calvin
5.La fotosíntesi del nitrogen
6.Rendiment i regulació de la fotosíntesi
7.Aspectes generals de l’anabolisme
Per a l’estudi de la fotosíntesi s’analitzen les entrades i sortides dels gasos de la planta.
Entre els organismes autòtrofs, que són capaços de produir la pròpia matèria orgànica, tots aquells que disposen de clorofil·la obtenen l’energia necessària per al seu metabolisme a partir de l’energia lumínica, gràcies al procés de la fotosíntesi. La resta de formes vivents també depenen de la matèria orgànica que els organismes fotosintètics sintetitzen amb l’energia captada en forma d’ATP i de NADPH, ja que les plantes i les algues verdes constitueixen, llevat d’unes quantes excepcions, el primer esglaó de les cadenes i piràmides tròfiques de la biosfera. L’estudi de la fotosíntesi, doncs, té molta importància, tant per aquest motiu com perquè és un procés durant el qual es produeix oxigen.
En les plantes no solament es produeixen sucres a partir de substàncies inorgàniques simples, sinó que al mateix temps s’absorbeix energia radiant còsmica i s’emmagatzema en forma d’energia química.
Des d’un punt de vista químic, la fotosíntesi serveix perquè el poder reductor originat gràcies a la captació de l’energia solar s’utilitzi per a la síntesi de compostos de carboni que formen la matèria viva.
La fotosíntesi és un procés d’oxidació-reducció en el qual el donador d’electrons (sovint l’aigua) s’oxida i l’acceptor (el diòxid de carboni i altres compostos com ara nitrats o sulfats) es redueix.
La fotosíntesi és decisiva en la globalitat de la biosfera, sobretot per dues raons: perquè en prové gairebé tota l’energia biològica, tant la que és utilitzada pels organismes heteròtrofs com l’emmagatzemada en els combustibles fòssils (només alguns ecosistemes molt particulars, com ara els de les dorsals oceàniques abissals, no en depenen), i també l’oxigen que els organismes aerobis utilitzen en la respiració.
L’estudi de la fotosíntesi té molta importància, tant des d’un punt de vista científic com d’aplicació pràctica. Per a la seva investigació, s’utilitzen sovint marcadors radioactius per poder seguir les rutes metabòliques. El rendiment de la fotosíntesi s’avalua, generalment, en funció del diòxid de carboni consumit o de l’oxigen produït, mitjançant la disposició de les plantes experimentals a l’interior de cambres amb circulació forçada d’aire, la composició del qual és valorada a l’entrada i a la sortida.
Comparació dels diferents tipus de fotosíntesi
Algues i plantes superiors
Cianobacteris o cianofícies
Bacteris sulfurats verds
Bacteris sulfurats purpuris
Donador d’hidrogen Producte oxidat
2O
En la cèl·lula eucariota, la fotosíntesi té lloc a l’interior del cloroplast, sobre la membrana dels tilacoides, on es troben els pigments fotosintètics. L’equació general de la fotosíntesi és aquesta:
llum CO2 + 2 H2D → (CH2O) + 2 D
Cèl·lules vegetals amb cloroplasts vistes a través del microscopi òptic.
Cadenes de cèl·lules de Nostoc commune: un procariota (cianobacteri) fotosintètic.
on H2D és un donador d’hidrogen (electrons) necessari per a la reducció del CO2 i (CH2O) és una manera de simbolitzar els compostos orgànics de carboni (carbohidrats). Les algues cianofícies (cianobacteris) i les plantes verdes utilitzen l’aigua com a donador electrònic i, en conseqüència, alliberen oxigen com a subproducte:
llum
n CO2 + n H2O → (CH2O)n + n O2
Cap altre organisme fotosintètic no allibera oxigen i, així, per exemple, els bacteris sulfurats verds que utilitzen sulfur d’hidrogen com a donador expulsen S elemental com a subproducte de l’oxidació d’aquell donador.
La fotosíntesi vegetal és un procés molt complex, integrat per nombrosos passos que es poden agrupar en dues fases. La primera, anomenada de les reaccions lumíniques o fase fotoquímica, té lloc als tilacoides i només en presència de llum. Consisteix en la síntesi d’ATP i de NADPH a partir de l’energia lumínica, gràcies a l’activitat dels pigments fotosintètics, i en l’alliberament simultani d’oxigen.
Com tots els plastidis, els cloroplasts són orgànuls exclusius de les cèl·lules vegetals; contenen pigments fotosintetitzadors.
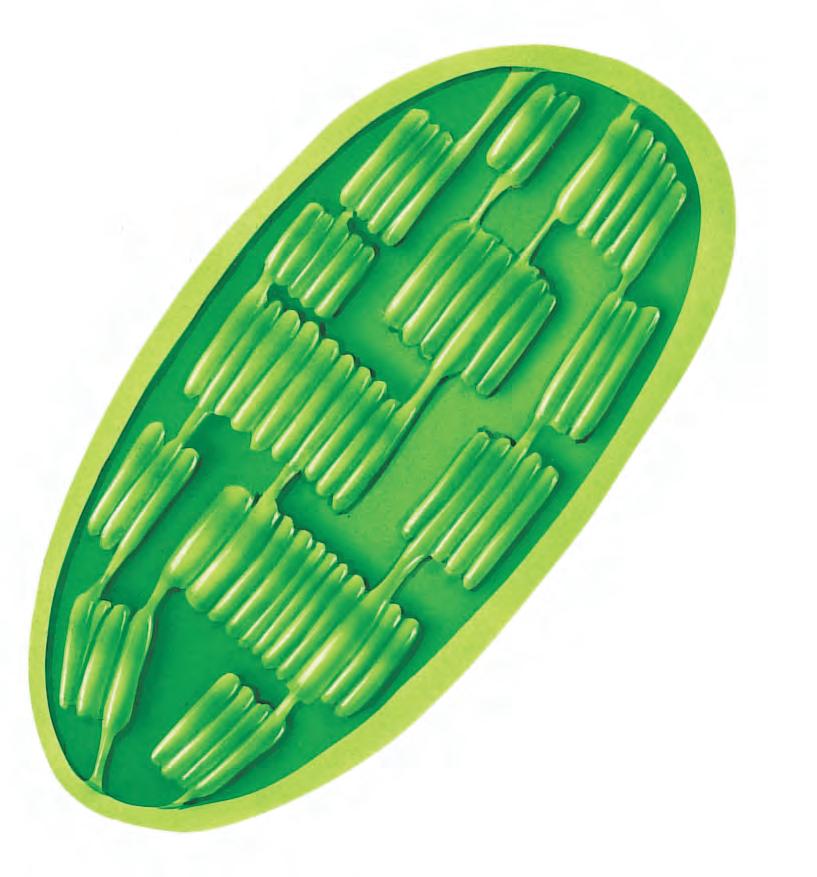
Esquema interpretatiu de l’estructura d’un
Els cloroplasts són de color verd perquè contenen bàsicament clorofil·la, el principal pigment que intervé en la fotosíntesi. Són especialment abundants en les cèl·lules dels òrgans fotosintetitzadors de les plantes, sobretot en les fulles. Un cloroplast típic és format per les parts següents:
membrana doble de tipus unitari que regula els intercanvis de materials entre el citoplasma i l’interior del cloroplast. matriu granulosa o estroma, formada per proteïnes, àcids nucleics, ribosomes i monòmers diversos. Dins l’estroma és on es produeixen les reaccions de la fase obscura de la fotosíntesi: fixació i reducció del CO2 per formar molècules hidrocarbonades. – Abundants vesícules allargades o tilacoides, que en certes zones apareixen apilades formant els grànums. Contenen la clorofil·la i els enzims responsables de la fase lumínica de la fotosíntesi: fotòlisi de l’aigua (amb alliberament d’electrons, d’ions hidrogen i d’oxigen que s’allibera en forma de gas) i síntesi de NADPH i d’ATP.
Com els mitocondris, els cloroplasts tenen un patrimoni genètic propi, amb ADN, ARN i ribosomes, amb el qual sintetitzen part de les proteïnes. Es divideixen per escissió de manera independent de la divisió cel·lular.
Igual que en el cas dels mitocondris, es creu que els cloroplasts descendeixen d’antics procariotes que es van introduir a les primitives cèl·lules eucariotes i van passar a ser-ne part integrant.
La segona, anomenada de les reaccions fosques o fase biosintètica, s’esdevé a l’estroma del cloroplast i tant pot donar-se en presència com en absència de llum, perquè, tot i que en última instància està regulada per aquesta, no en depèn directament. Consisteix en la utilització de l’ATP i del NADPH per reduir –fixar–el CO2 i sintetitzar glucosa i altres productes orgànics.
Reaccions lumíniques en la membrana dels tilacoides
a) Molècula de clorofil·la.
En la fórmula de la clorofil·la a, R = –CH3
En la fórmula de la clorofil·la b, R = –CHO b) Fases de la fotosíntesi.
Reaccions fosques en l’estroma
Glucosa i altres compostos
Les plantes emmagatzemen els excedents de la fotosíntesi en forma de polisacàrids. En la il·lustració es poden observar uns fragments de cèl·lules de patata carregats de grans de midó (en blau) vistos a través del microscopi electrònic de rastreig (230x).
En la fórmula hv, h representa la constant de Planck i v, la freqüència.
a) Excitació d’un àtom per absorció de llum.
b) Espectres d’absorció dels pigments fotosintètics.
a
Àtom en el seu estat fonamental
Estat excitat: l’electró es troba en un nivell energètic superior
Les plantes tenen diversos pigments que els permeten respondre a la intensitat, la direcció, la durada i el color de la llum. Els pigments fotosintètics (clorofil·les i carotenoides) els permeten efectuar la fotosíntesi; els receptors de les radiacions ultraviolades B, els criptocroms (que capten les radiacions ultraviolades A: el blau i el verd) i els fitocroms (sensibles al vermell i al vermell llunyà), els permeten regular la fenologia (germinació, floració, fructificació, pèrdua de les fulles, etc.), en funció de la durada relativa del dia i de la nit, i el creixement, en funció de l’atapeïment de l’entorn, atapeïment que detecten mitjançant la coloració relativa de la llum que reben.
La clorofil·la és el principal agent de captació de l’energia lumínica de la planta. És un pigment de color verd, que conté Mg. La seva estructura molecular és formada per un cap, constituït per un anell d’estructura porfirínica (amb Mg2+), i una cua, constituïda per un alcohol isoprenoide de 20 carbonis, el fitol. Totes les plantes superiors tenen clorofil·la a i clorofil·la d’un segon tipus, sovint clorofil·la b, que difereix de la primera per un petit detall estructural. En la superfície dels tilacoides del cloroplast, les clorofil·les estan acompanyades d’altres pigments accessoris, entre els quals hi ha els carotenoides (vermells, com ara el β-carotè; grocs, com ara la xantofil·la, etc.), que actuen com a receptors lluminosos suplementaris, si bé són menys eficaços,
Retorn a l’estat fonamental; alliberament, per fluorescència o calor, de l’energia d’excitació
en absorbir llum de longituds d’ones diferents i també, en certa manera, com a filtre que protegeix les clorofil·les dels excessos d’energia. L’absorció per part d’una molècula d’un fotó o quàntum d’energia lumínica (hν) fa que aquesta quedi en un estat excitat, en el qual un electró salta fins a un nivell energètic superior. Aquest estat és molt inestable i la molècula retorna, de manera rapidíssima, a l’estat originari, tot alliberant l’excés d’energia en forma de llum, de major longitud d’ona (fluorescència), o de calor. En el cloroplast, en canvi, els electrons excitats de la clorofil·la no retornen al seu estat, sinó que són expulsats de la molècula excitada i salten fins al primer membre d’una cadena de transportadors electrònics, al final de la qual se sintetitzen el NADPH i l’ATP. També pot ser que l’energia absorbida es transmeti per ressonància a tot el conjunt.
En el cloroplast, la clorofil·la i els pigments accessoris estan estretament associats a proteïnes i incrustats a la bicapa lipídica de la membrana dels tilacoides. Aquests complexos de proteïna i pigments formen unes pantalles col·lectores d’energia que són unes agrupacions funcionals integrades per unes 200-300 molècules de clorofil·la i un nombre menor de carotenoides i que s’anomenen fotosistemes. Mentre que totes les molècules del fotosistema poden absorbir fotons –són molècules antena o col·lectores–, només una o dues molècules de clorofil·la –el centre de reacció fotoquímic– tenen capacitat fotoquímica per iniciar la conversió de l’energia lumínica en química.
Hi ha dos tipus d’agrupacions funcionals: el fotosistema I (FS I) i el fotosistema II (FS II), numerats segons l’ordre en què van ser descoberts, si bé el FS II és el primer a funcionar. Mentre que les plantes superiors i els cianobacteris disposen d’ambdós tipus, la resta dels organismes fotosintètics només disposen del FS I. Aquests dos fotosistemes es diferencien per les proporcions relatives de clorofil·la a i b, per les característiques dels seus centres de reacció, per la seva ubicació i pels transportadors d’electrons que els acompanyen. El fotosistema I, més ric en clorofil·la a, es localitza en els grànuls o grànums i el seu centre de reacció s’anomena P700, perquè absorbeix de preferència en els 700 nm de l’espectre lumínic. En canvi, del FS II –més voluminós i més ric en clorofil·les– es troba a les lamel·les i a la perifèria dels grànuls, i té un centre de reacció denominat P680, perquè té un màxim d’absorció a 680 nm.
El FS I pot funcionar amb independència del FS II i origina fluxos d’electrons que aboquen a la formació d’ATP i de NADPH. En canvi, el FS II només funciona en coordinació amb el FS I i origina l’alliberament d’oxigen característic de la fotosíntesi de les plantes superiors (i cianofícies) en extreure electrons de l’aigua. Tal com veurem tot seguit, el FS I funciona com un fort reductor i el FS II, com un fort oxidant.
Funcionament del fotosistema.
SOL
Acceptor primari d’electrons
Centre de reacció


Pigments accessoris

Molècules de clorofil·la receptora Fotó
Llum (hν) Direcció del transport electrònic
P estat basal
P excitat P «forat electrònic»
Acceptor 1 oxidat
Acceptor 1 reduït
Tal com va contribuir a demostrar el bioquímic britànic Robert Hill al llarg de la primera meitat del segle XX, les plantes utilitzen l’energia lumínica captada per reduir el NADP+, en un procés en el qual intervenen tots dos fotosistemes i que es pot esquematitzar de la manera següent:
Acceptor 2 reduït
Acceptor 2 oxidat
Durant la fase fotoquímica de la fotosíntesi, també se sintetitza ATP. En conjunt, les reaccions lumíniques poden resumir-se així: energia lumínica + clorofil·la 12 H2O
+ 18 ATP
Efectivament, l’energia captada és emprada per fer circular els electrons contra gradient des de l’aigua fins al NADP. Quan l’energia capturada per algun pigment del fotosistema arriba al P700 del FS I, un electró del P700 s’excita fins al punt que salta i és capturat pel primer membre d’una cadena de transportadors d’electrons, el qual, lògicament, es redueix, alhora que queda un «forat» en el P700, ja que li falta 1 e–L’electró viatja a través de la cadena constituïda per proteïnes –situades en la mateixa membrana del tilacoide–, que tenen potencials de reducció estàndard negatius de magnitud decreixent. El primer element de la cadena és la P430, una proteïna ferro-sulfurada encara mal coneguda; el segon és la ferredoxina, i el tercer, que transfereix els electrons al NADP+, és la ferredoxina-NADP-òxido-reductasa. Quan finalment els electrons arriben al NADP+, el redueixen a NADPH –molècula amb un elevat poder reductor, que s’usarà com a donador d’electrons en la segona etapa de la fotosíntesi–, segons l’equació següent (fan falta 2 electrons i, per tant, l’energia de dos fotons per formar una molècula de NADPH):
NADP+ + 2 e– + H+ NADPH
Acceptor 3 oxidat
Acceptor 3 reduït
Flux d’electrons a través d’una cadena de transportadors electrònics després de l’excitació del centre reactiu P.
Paral·lelament, el «forat» originat en el P700 s’omple amb electrons procedents del P680 o centre de reacció del FS II, que viatgen cedint progressivament el seu excés d’energia a través d’una altra cadena de transportadors o cadena de connexió, que relaciona el fotosistema I amb el II. El primer element d’aquesta cadena és la feofitina, i a continuació hi ha la plastoquinona, el citocrom b, el citocrom f i la plastocianina, la qual transfereix els electrons al P700
Al seu torn, el «buit electrònic» del P680 s’omple amb electrons procedents de la fotòlisi de l’aigua. Efectivament, en el seu estat inestable, el P680 és capaç d’induir l’oxidació de l’aigua, segons la reacció següent:
Mentre que el O2 s’allibera en forma gasosa, els electrons acaben arribant –a través de transportadors electrònics no ben coneguts– al P680, i els H+, que serveixen en part per reduir el NADP+, s’acumulen transitòriament en el tilacoide.
L’acidificació de l’interior del tilacoide, per acumulació de protons, genera un potencial de membrana, perquè la concentració de protons H+ és superior a la que hi ha a l’estroma. D’aquesta manera, els ions hidrogen, que tendeixen a sortir a l’estroma, alliberen una energia que serveix per a la síntesi d’ATP a partir d’ADP i de Pi. Aquest procés,
Etapes i processos de la fase lumínica de la fotosíntesi (en verd, els productes finals; en vermell, la circulació dels electrons i la de l’ió H+).
+ és un dinucleòtid d’adenosina i de nicotinamida. RECORDA
inicialment descobert pel bioquímic Daniel Arnon l’any 1954, es denomina fosforilació fotosintètica o fotofosforilació. El gradient de protons H+ es veu incrementat pel transport que realitzen els citocroms des de l’estroma cap a l’interior del tilacoide, gràcies a l’energia del pas dels electrons. Les ATP-sintetases de la membrana dels tilacoides retornen els H+ a l’estroma i aprofiten l’energia alliberada en el pas d’aquests H+ per formar ATP a partir d’ADP i Pi
A part d’aquest flux electrònic no cíclic considerat fins ara, en els cloroplasts també té lloc un flux cíclic en el qual participa únicament el fotosistemaI. Quan funciona aquest sistema, l’electró excitat que arriba al P430 no segueix la via que conduiria fins al NADP, sinó que a través d’una ruta de ronda, formada per alguns transportadors de la cadena de connexió, retorna al P700. Durant aquest flux electrònic cíclic, no es produeix ni NADPH ni O2, però sí ATP, perquè la porció de la cadena de connexió inclou el pas pels citocroms i l’alliberament dels ions H+. Atès que aquesta síntesi d’ATP es produeix en el transcurs del flux cíclic, s’anomena fotofosforilació cíclica, per distingir-la de la no cíclica, que es produeix en el transcurs del funcionament cooperatiu del FS I i el FS II. El flux electrònic i la fosforilació associada a la fotosíntesi tenen moltes similituds amb els processos anàlegs que –tal com hem vist en la unitat anterior– ocorren als mitocondris durant els processos oxidatius.
9.1. Explica per quina raó els tilacoides dels cloroplasts de moltes plantes superiors tenen una orientació paral·lela entre si i per què els cloroplasts estan situats en paral·lel a la superfície cel·lular.
9.2. L’any 1804, el botànic suís Nicolas Théodore de Saussure va mesurar la quantitat d’oxigen i de matèria seca produïda per les plantes i va veure que era més alta que la quantitat de diòxid de carboni consumit durant la fotosíntesi. D’on procedeix l’excés de pes?
9.3. Escriu la reacció global de la fotosíntesi que té lloc als bacteris sulfurats verds i digues si aquests bacteris produeixen ATP, NADPH i O2 i si consumeixen CO2.
9.4. Digues quina és la funció principal de la fotosíntesi per a la planta i explica si coincideix amb els beneficis que n’obtenim els éssers humans.
9.5. Quan la relació NADPH/NADP+ és elevada, la fotofosforilació és principalment cíclica. Digues si durant aquesta mena de fosforilació: a) se sintetitza ATP; b) se sintetitza NADPH; c) s’allibera oxigen.
9.6. Quin és l’objectiu principal de la fosforilació cíclica?
9.7. Quin sentit té que la intensitat de la fosforilació cíclica estigui determinada per la concentració relativa de NADPH i NADP+?
9.8. Explica el paper de la llum en la fotosíntesi i quines són les característiques de la clorofil·la que resulten importants per a la fotosíntesi.
9.9. Digues què és un fotosistema i què és el centre de reacció.
9.10. Copia les frases següents, escriu al costat de cadascuna si és certa o falsa i explica per què.
a) Els cianobacteris alliberen oxigen com a subproducte fotosintètic.
b) En la fase lumínica de la fotosíntesi, se sintetitza NADP+
c) El NADP+ conté tres molècules d’àcid fosfòric.
d) Les reaccions de la fase lumínica tenen lloc dins l’estroma del cloroplast de la cèl·lula.
e) Totes les plantes superiors tenen clorofil·la a.
f) Durant el flux electrònic cíclic no es produeix ATP.
9.11. El metge i químic belga Jan Baptista van Helmont (1577-1644) va estudiar la nutrició de les plantes. Ell mateix relatà l’experiència:
Vaig posar en un test 90 kg de terra seca, la vaig regar i vaig plantar-hi un plançó de salze de 2,25 kg. Periòdicament el vaig regar amb aigua de pluja. Al cap de cinc anys s’havia fet gran i pesava 77 kg. Aleshores vaig pesar novament la terra del text, assecada, que ara feia 89,94 kg. És a dir, més de 74 kg de tronc, branques i fulles s’havien format només d’aigua.
Contesta a les preguntes següents i raona les respostes:
a) D’on procedeix la matèria que suposa el guany de pes del salze?
b) Tenia raó Van Helmont en la seva interpretació dels resultats?
c) En el segle següent, Joseph Priestley, que també va estudiar el tema, afirmà que «les plantes regeneren l’aire viciat per la respiració dels animals». Què volia dir amb això? Per explicar la teva resposta fes un esquema de la fotosíntesi i de la respiració.
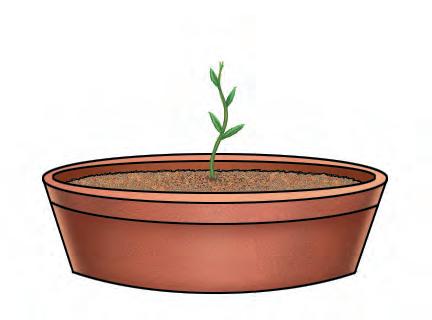
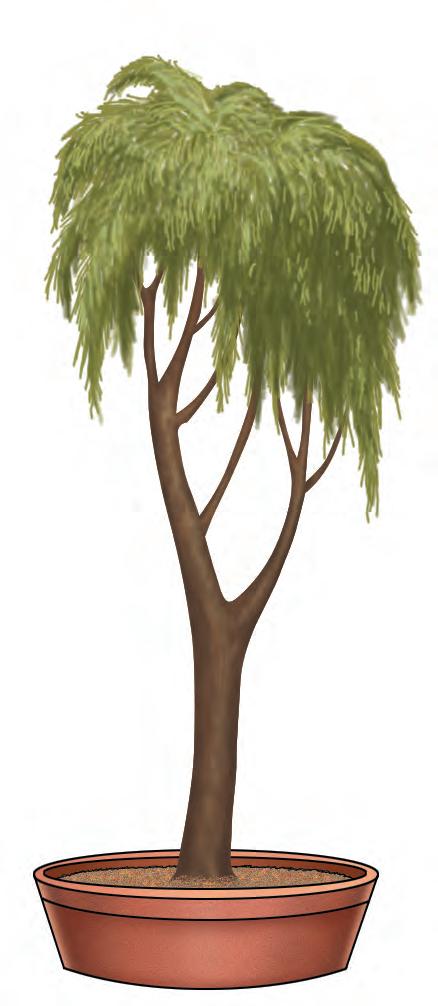
Ribulosa-difosfat-carboxilasa
Els organismes fotosintètics poden emprar CO2 com a font única de carboni per abastar totes les seves molècules orgàniques. En aquesta fase biosintètica «fosca», que no requereix directament la llum, s’usa l’energia continguda en l’ATP sintetitzat durant les reaccions lumíniques i el poder reductor del NADPH.
3-fosfoglicerat
Aquesta reducció del CO2 –que no poden fer les cèl·lules animals– implica la fixació del CO2 sobre un metabòlit intermediari i la seva posterior transformació en glucosa a través d’un conjunt de reaccions recurrents, denominat cicle de Calvin en honor de Melvin Calvin, el bioquímic que poc després de 1940 en descobrí el mecanisme. El conjunt d’aquestes reaccions es pot resumir de la manera següent:
61,5-difosfat de ribulosa+12NADPH+12H+ +18ATP+6CO2 + +12 H2O →
→ 6 1,5-difosfat de ribulosa +C6H12O6 (glucosa) +12 NADP+ + + 18 ADP + 18 Pi
3-fosfoglicerat
Fixació del CO2 sobre l’1,5-difosfat de ribulosa.
En tot aquest procés, hi té un paper especialment destacat l’enzim ribulosa-difosfat-carboxilasa (o RuDP-carboxilasa), situat a la superfície externa de la membrana tilacoïdal. Per mitjà d’aquest enzim, les plantes poden, en primer lloc, addicionar el CO2 sobre una pentosa (el difosfat de ribulosa) i, a continuació –atès que és molt inestable–, escindir-lo en dues molècules de tres carbonis: dos 3-fosfoglicerats. És per aquest motiu que quan, amb finalitat investigadora, s’utilitza CO2 marcat radioactivament (14CO2), el primer compost marcat que apareix és el 3-fosfoglicerat (àcid fosfoglicèric o PGA).
Esquema del cicle de Calvin alimentat per l’ATP i el NADPH sintetitzats en les reaccions lumíniques.
Amb despesa de NADPH i d’ATP, i després de complicades transformacions de reducció, el 3-fosfoglicerat dóna lloc a trioses-fosfat, les quals són emprades, un cop exportades al citosol, per a la síntesi de glucosa, de glucosa-fosfat i de fructosa. És a partir d’aquestes trioses que es forma la sacarosa, la principal forma química de transport dels sucres en la planta. Tanmateix, quan el ritme de fixació del CO2 és més elevat que el de síntesi de sacarosa, aleshores una part de les trioses no surt cap al citosol i s’usa a l’interior del cloroplast per a la síntesi de midó, que en constitueix una reserva temporal.
La via de síntesi de la glucosa-6-fosfat conté un seguit de reaccions, inverses a les de la glucòlisi o molt semblants a les de la gluconeogènesi, que hem estudiat en la unitat anterior. La característica més destacada del cicle de Calvin és la recurrència: si per cada molècula de CO2 fixada s’empra una molècula de ribulosa-1,5-difosfat (RuDP), al cap d’una volta sencera del cicle –que implica la fixació de 6 molècules de CO2–, es regenera totalment una molècula d’aquell RuDP.
Moltes plantes tropicals o d’origen tropical, per exemple el blat de moro, el mill o la canya de sucre, presenten una variant de la fotosíntesi –concretament de la fixació del CO2– que va acompanyada d’una anatomia foliar diferent. Al voltant dels feixos conductors de la fulla, es disposa una corona de cèl·lules de la beina, cèl·lules grosses amb abundants cloroplasts, i externament a aquests una segona corona de cèl·lules clorofíl·liques, les cèl·lules del mesòfil
La diferència funcional que distingeix aquestes plantes és que el primer compost de carboni identificable en què es troba el carboni del CO2 incorporat és un compost de 4 carbonis, l’oxalacetat, d’on ve precisament el nom de plantes C4 amb què se les designa. L’oxalacetat es forma en les cèl·lules del mesòfil per fixació del CO2 sobre el fosfoenolpiruvat, i posteriorment, dins les mateixes cèl·lules, és reduït a malat (o, en algunes espècies, a aspartat). El malat passa a les cèl·lules de la beina a través dels plasmodesmes, uns filaments que comuniquen dues cèl·lules adjacents, on és descarboxilat en piruvat i CO2. Aquest últim hi és utilitzat, seguint el cicle de
Cèl·lules en palissada
Feix conductor
Cambra subestomàtica
Estoma
Cèl·lules del mesòfil
Feix conductor
Cèl·lules de la beina
Esquema generalitzat de les reaccions químiques pròpies de la via C4.
Calvin normal, per formar 3-fosfoglicerat, mentre que el piruvat és retornat a les cèl·lules del mesòfil on, després de fosforilat, forma fosfoenolpiruvat, que pot recomençar el procés.
La fixació prèvia de CO2 en un compost de 4 carbonis, o via de Hatch-Slack, i la seva transferència a les cèl·lules de la beina, on torna a alliberar-se per iniciar la via normal del cicle de Calvin (o viaC3), té un significat adaptatiu clar, malgrat que, d’entrada, requereix més energia, ja que hi ha un dispendi extra d’ATP per regenerar el fosfoenolpiruvat. Efectivament, la via C4 redueix les pèrdues per fotorespiració i és útil perquè serveix per concentrar CO2, i, per tant, permet mantenir un ritme alt de fotosíntesi amb els estomes més tancats, la qual cosa representa un estalvi d’aigua. Per aquesta raó, les plantes C4 poden créixer amb eficàcia en indrets àrids (d’insolació i temperatures elevades i aigua escassa), i algunes, com ara el blat de moro, són molt apreciades per al cultiu perquè utilitzen l’aigua amb molta eficiència.
S’anomena fotorespiració un procés, de significat obscur, és a dir, no prou conegut, pel qual les cèl·lules vegetals utilitzen l’oxigen per oxidar substrats, amb despesa del NADPH obtingut en la fotosíntesi.
La fotorespiració és un procés simultani a la fotosíntesi, que té lloc quan hi ha il·luminació i que és independent de la respiració mitocondrial (que la cèl·lula vegetal realitza, igual que l’animal, de dia i de nit). A més, a diferència de la respiració mitocondrial, la fotorespiració no va acompanyada de síntesi d’ATP; és una mena de dilapidació de recursos sense cap utilitat aparent.
En hores de sol intens, quan el temps és càlid i sec, les plantes ajusten els seus estomes (els porus de la superfície de les fulles) per evitar la pèrdua d’aigua. Al mateix temps, però, a l’interior de les cèl·lules fotosintètiques augmenta la concentració de O2, que pot arribar a superar la del CO2, el qual disminueix. Quan això passa, és l’oxigen i no pas el diòxid de carboni el que s’uneix amb la ribulosa-difosfat-carboxilasa (un enzim que és alhora una carboxilasa i una oxidasa) per iniciar les esmentades reaccions de fotorespiració.
La fotorespiració –que depèn del quocient O2 /CO2 – és pràcticament inexistent en les plantes C4, ja que la fixació prèvia del CO2 n’augmenta la concentració interna. En canvi, la fotorespiració és un problema greu per a l’agricultura de les zones temperades, ja que provoca que les plantes C3 presentin minves importants del rendiment fotosintètic, el qual, en dies calorosos i sense vent, pot baixar fins al 50%.
4.2.
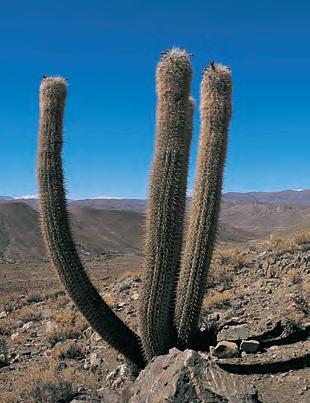
Les denominades plantes CAM –sigla en anglès de ‘metabolisme àcid de les crassulàcies’–, com el cactus, la lleterassa, la pinya americana, etc., són plantes sovint pròpies d’indrets molt àrids, desèrtics o subdesèrtics. Si bé les plantes CAM no tenen l’anatomia foliar de les C4, presenten, tanmateix, una curiosa modificació de la fotosíntesi: la incorporació del CO2 té lloc de nit, mitjançant una variable del cicle de Calvin i amb unes reaccions prèvies, similars a les de les plantes C4, que condueixen a l’acumulació transitòria d’un compost de 4 carbonis, el malat.
El significat adaptatiu és clar: els estomes són oberts de nit i aleshores es capta i s’emmagatzema el CO2, mentre que es tanquen de dia, moment en què té lloc l’autèntic cicle de Calvin. D’aquesta manera, la planta economitza l’aigua.
b a
a) Estoma de tradescància vist a través del microscopi òptic.
b) Estoma de favera vist a través del microscopi electrònic de rastreig.
El cicle del nitrogen en els ecosistemes.
Desnitrificació (pseudomones) Fixació del nitrogen atmosfèric (rizobis)
Les plantes utilitzen l’energia captada en les primeres fases de la fotosíntesi, en forma d’ATP i de NADPH, també per sintetitzar els compostos orgànics que contenen nitrogen, a través de vies metabòliques que reben el nom de fotosíntesi del nitrogen. Malgrat que sovint aquests processos s’estudien a part, realment intervenen en el procés fotosintètic, que no acaba amb la síntesi de glucosa o de sacarosa.
Microorganismes vegetals simbiòtics
La major part de plantes només poden emprar els nitrats com a font inorgànica de nitrogen. Aquests nitrats són reduïts, en un procés que requereix vuit electrons (N5+ + 8 e– → N3–), fins a amoníac:
Nitrogen orgànic (plantes, animals)
Nitrosomones
Nitrogen orgànic del sòl (deixalles, cadàvers)
Sòl Amonificació (microorganismes descomponedors)
Nòduls radicals de pesolera, on viuen en simbiosi els rizobis.
Els complexos d’enzims de les nitratoreductases i les nitritoreductases catalitzen aquest procés en dues fases. Finalment, l’amoníac resultant (NH3), que és tòxic per a la cèl·lula, s’incorpora de manera ràpida a una molècula d’àcid glutàmic per formar glutamina, forma a partir de la qual se sintetitzen els altres compostos nitrogenats.
Sovint, les plantes no disposen dels nitrats necessaris i això en redueix el creixement i la producció. Lamentablement, aquella limitació als nitrats com a fonts de nitrogen els impedeix de disposar de la més gran reserva de nitrogen existent, el N2 atmosfèric, que no obstant això pot ser utilitzat pels denominats bacteris fixadors del N, els quals disposen de l’enzim necessari, la nitrogenasa, per reduirlo fins a NH3:
nitrogenasa, ATP
Algunes plantes, com ara les lleguminoses, poden establir simbiosis en els nòduls radicals amb bacteris presents en el sòl, com ara els rizobis. D’aquesta manera depenen molt poc dels adobs nitrogenats.
La llum és bàsica per a la fotosíntesi. Tot i que les «reaccions fosques» de la fotosíntesi no depenen directament de la llum, moltes estan catalitzades per enzims que resulten estimulats, indirectament, per la illuminació dels cloroplasts. De fet, la velocitat final de la fotosíntesi és limitada per la velocitat de la reacció de fixació del CO2, catalitzada per la ribulosa-difosfat-carboxilasa, un enzim al·lostèric de molècula complexa que és activat de tres maneres diferents, totes dependents de la il·luminació dels cloroplasts.
Aquestes tres maneres diferents són les següents:
– L’increment del pH a l’estroma: la il·luminació afavoreix el pas d’ions H+ de l’estroma cap als tilacoides; aquest pas d’ions l’activa la carboxilasa, situada a la superfície externa de la membrana dels tilacoides.
– L’increment d’ions Mg2+, que penetren a l’estroma a mesura que en surten els ions H+, amb la il·luminació.
– L’increment de NADPH, que és format, en presència de llum, pel fotosistema I.
Des d’un punt de vista pràctic, fotosíntesi equival a producció vegetal; d’aquí la importància d’estudiar-la i de tractar de millorar-ne el rendiment. De l’equació general de la fotosíntesi es desprèn quins són els factors externs que més influeixen en el seu rendiment: disponibilitat de l’aigua i concentració del CO2, sense oblidar la disponibilitat de nitrats a la qual ja ens hem referit en considerar la «fotosíntesi del nitrogen». A més, hi tenen influència també la temperatura i la disponibilitat d’altres nutrients minerals. La seva acció és interrelacionada i, en general, hi ha un factor limitant, és a dir, el factor més rar és el que marca la producció.
Dels factors externs a les plantes, els que més deixen sentir els seus efectes quan n’hi ha dèficit són l’aigua (en els indrets de clima àrid, la vegetació és escassa i els cultius són problemàtics), la temperatura (amb òptims entre els 25 °C i els 35°C) i la disponibilitat de nutrients (que obliga a la pràctica de l’adobament –amb nitrats, fosfats i sals potàssiques–per mantenir la productivitat dels cultius). A la pràctica, però, sovint el CO2 és el factor limitant.
De fet, la temperatura afecta de manera diferent les plantes C3 i les C4
L’estudi de la fotosíntesi té importants conseqüències pràctiques, ja que el metabolisme fotosintètic és la base de la producció vegetal. Millorar el rendiment dels vegetals equival a augmentar la productivitat de les collites.
La disponibilitat d’aigua, nitrats i altres nutrients minerals, com també una temperatura adequada, són els factors externs que més influeixen en la fotosíntesi i, per tant, en la producció dels cultius.
Els ecosistemes madurs i rics en biodiversitat, com ara aquesta pluviïsilva tropical de Belize, a l’Amèrica Central, tenen produccions fotosintètiques globals elevades.
Producció fotosintètica comparada d’alguns biomes i formacions vegetals.
Mentre que aquestes darreres tenen un òptim a temperatures més elevades, en les C3 l’eficàcia de la fotosíntesi minva, ja que, com hem vist abans, augmenta la fotorespiració, en la qual es consumeix una part dels productes de la fotosíntesi. No tota l’energia solar que aconsegueix travessar l’atmosfera i arribar a la superfície terrestre pot ser aprofitada per les plantes. De les 2 cal/cm2/min que hi arriben, només un 44% (és a dir, 0,8 cal/cm2/min) correspon a longituds d’ona aprofitables, ja que un 52% són infrarojos i un 4%, llum ultraviolada no utilitzable. De l’energia utilitzable, una fulla pot aprofitar-ne generalment un 85% (la resta és reflectida per la seva superfície o la travessa sense poder ser captada). I del 85% només un 5% és transformat en energia química, és a dir, aprofitat. Però com que la fotosíntesi, que es dóna només durant el dia, ha de compensar, a més, les despeses d’energia de la planta en processos com ara la respiració –continuada durant nit i dia–, resulta que, en definitiva, un camp de blat de moro (una espècie molt eficient) té una producció neta de matèria orgànica durant la seva vida d’un 3%, si fa no fa, de l’energia radiant que ha rebut. La xifra pot semblar baixa, però tot i això és important si tenim en compte la quantitat d’energia solar que arriba a la Terra.
9.12. Les cèl·lules de les fulles de les plantes verdes produeixen oxigen durant el dia com a conseqüència de la fotosíntesi. I de nit, també en produeixen? Si de dia consumeixen CO2, de nit també ho fan?
9.13. En condicions d’il·luminació intensa, les plantes C4 tenen una velocitat fotosintètica, amb relació a la unitat de superfície foliar, més alta que les plantes C3, tot i que la ruta C4 gasta més ATP. Com s’explica això?
9.14. La il·lustració del costat mostra dos vasos de precipitats amb aigua i elodea (una planta aquàtica) que hem deixat en les mateixes condicions d’il·luminació, temperatura, etc. L’única diferència entre els dos preparats és que mentre que l’aigua del primer precipitat (a) és bullida, l’aigua del segon (b) no ho és, i a més s’hi ha afegit una mica de bicarbonat potàssic. Explica el diferent comportament dels dos sistemes.
9.15. Copia l’equació de les reaccions lumíniques de la pàgina 311 i l’equació que resumeix el conjunt de la fase fosca de la pàgina 315. Si les sumes, què obtindràs? Està igualada, aquesta reacció?
9.16. La taula del costat mostra la productivitat fotosintètica màxima, en condicions òptimes de laboratori, de diferents vegetals especialment productius. Com explicaries aquests resultats? Hi ha alguna raó per la qual el cultiu del gira-sol s’estengui tant a les nostres comarques?
9.17. Quins són els principals nutrients que les plantes necessiten i quines són les seves vies d’entrada? Digues com aquests nutrients es converteixen en components orgànics.
Blat de moro (C4)
Canya de sucre (C4)
Gira-sol (C3)
Blat (C3)
Remolatxa (C3) 26
Mongetera (C3) 15
Roure (C3) 10
9.18. Tenint en compte que la reacció global de la fase lumínica de la fotosíntesi és una reacció d’oxidació-reducció, digues quin és el compost que s’oxida i quin el que es redueix.
9.19. El gràfic de la dreta mostra la relació entre la temperatura i la producció fotosintètica.
a)Explica si les relacions entre la producció fotosintètica i la disponibilitat d’aigua i entre la producció fotosintètica i la disponibilitat de CO2 donarien gràfics similars.
b)Quines conseqüències pràctiques pot tenir, per a un pagès, una disponibilitat mínima d’un dels tres factors esmentats (temperatura, aigua i CO2)?
Taxa de fotosíntesi
Mínim Màxim Temperatura
La cèl·lula és com una fàbrica química, on se sintetitzen milers de molècules diferents. El conjunt de les reaccions químiques que tenen relació amb la síntesi d’aquestes molècules s’anomena anabolisme. Les matèries primeres i l’energia necessària per a la síntesi procedeixen del catabolisme.
La biosíntesi dels glúcids, especialment de la glucosa, es produeix de manera diferent segons si les cèl·lules són autòtrofes o heteròtrofes. En les primeres, la glucosa s’origina en els cloroplasts mitjançant la fotosíntesi, a partir del diòxid de carboni atmosfèric i de l’energia solar.
En les cèl·lules heteròtrofes, la glucosa se sintetitza a partir del carboni d’altres molècules orgàniques i de l’energia emmagatzemada a l’ATP. Aquest procés s’anomena gluconeogènesi
Les plantes emmagatzemen els excedents de glucosa, en forma de midó, en orgànuls específics (amiloplasts) presents en les cèl·lules dels teixits de reserva, com ara aquesta cèl·lula de parènquima de patata (540x).
A partir de la glucosa, o d’altres monosacàrids, té lloc la biosíntesi de diversos polisacàrids. En les plantes, la glucosa s’emmagatzema en forma de midó, mentre que en els animals ho fa en forma de glicogen, en un procés anomenat glicogènesi.
La gluconeogènesi és la via anabòlica mitjançant la qual es pot originar glucosa a partir de metabòlits no glucídics, com ara aminoàcids i glicerol. En els mamífers, la major part de la gluconeogènesi té lloc al fetge i, en menys proporció, al ronyó.
La glucosa és la principal font d’energia per al cervell i les fibres musculars. Després d’unes 18 hores en dejú, s’exhaureixen les fonts directes de glucosa (glúcids de la dieta i glicogen de reserva de les cèl·lules hepàtiques). En aquest estat, la gluconeogènesi, en l’àmbit hepàtic i renal, és l’única font de glucosa de l’organisme i, per tant, essencial per al funcionament correcte del cervell i de la musculatura.
La gluconeogènesi i la glucòlisi són dues vies clarament relacionades. Mentre que les reaccions de la glucòlisi produeixen àcid pirúvic a partir de glucosa, amb obtenció d’ATP, les reaccions de la gluconeogènesi permeten la conversió de l’àcid pirúvic en glucosa. Tot i així, les reaccions d’una via no són la simple reversió de les de l’altra, ja que les tres reaccions exergòniques de la glucòlisi són substituïdes en la gluconeogènesi per reaccions endergòniques, que necessiten l’aportació d’energia i són catalitzades per enzims específics.
La primera reacció de la gluconeogènesi té lloc als mitocondris, mentre que les restants es desenvolupen en el citosol de la cèl·lula.
La reacció global resumida de la gluconeogènesi és la següent:
2 àcid pirúvic + 4 ATP + 2 GTP + 2 NADH + 2 H+ + 4 H2O → → glucosa + 2 NAD+ + 4 ADP + 2 GDP + 6 P
+ P i
Glucosa
Glucosa-6-fosfatasa
Glucosa
Hexoquinasa
Glucòlisi
Glucosa-6-fosfat
Fosfoglucoisomerasa
Fructosa-6-fosfat
Fructosa-1,6-difosfatasa
Dihidroxiacetona-fosfat
Fructosa-1,6-difosfat
Trifosfat-isomerasa
Gliceraldehid-3-fosfat (2 molècules)
Àcid 1,3-difosfoglicèrid (2 molècules)
Fosfoglicerat-quinasa
Àcid 3-fosfoglicèrid (2 molècules)
Fosfogliceromutasa
Àcid 2-fosfoglicèrid (2 molècules)
Àcid fosfoenolpirúvic (2 molècules)
Fosfoenolpirúvic-carboxiquinasa
Gluconeogènesi
Àcid oxalacètic
Pirúvic-carboxilasa
Àcid pirúvic (2 molècules)
Gliceraldehid-3-fosfat (2 molècules)
Glucosa-6-fosfat
Glucosa-6-fosfat
Fosfoglucoisomerasa
Fructosa-6-fosfat
Fructosa-6-fosfat
Fosfofructoquinasa
Fructosa-1,6-difosfat
Aldolasa
Trifosfat-isomerasa
Dihidroxiacetona-fosfat
Gliceraldehid-3-fosfat-deshidrogenasa
Àcid 1,3-difosfoglicèrid (2 molècules)
Fosfoglicerat-quinasa
Àcid 3-fosfoglicèrid (2 molècules)
Fosfogliceromutasa
Àcid 2-fosfoglicèrid (2 molècules) Àcid fosfoenolpirúvic (2 molècules)
Enolasa Piruvat-quinasa
Àcid pirúvic (2 molècules)
Biosíntesi del glicogen. a
a) Tall intestinal en què s’aprecien les microvellositats per on els àcids grassos i la glicerina procedents de la digestió són absorbits.
b) Metabolisme dels lípids.
Glucosa
Hexoquinasa
Glucosa-6-fosfat
Fosfoglucomutasa
Glucosa-1-fosfat
UDP-glucosa
El glicogen és el principal polímer de la glucosa en els animals. S’emmagatzema en les cèl·lules hepàtiques (en forma de grànuls de 1000 a 4000 nm de diàmetre) i, en menys proporció, a les fibres musculars i al cervell.
La biosíntesi del glicogen inclou les reaccions següents: fosforilació de la glucosa amb formació de glucosa-6-fosfat; transformació de la glucosa-6fosfat en glucosa-1-fosfat; combinació de la glucosa-1-fosfat amb UTP per formar UDPglucosa (UDPG); finalment, la UDPG actua com a donador d’unitats de glucosa que s’afegeixen en una cadena de glicogen encebador, que s’anirà allargant.
L’adrenalina (secretada per les glàndules suprarenals) i el glucagó (secretat pel pàncrees) són hormones que inhibeixen la síntesi de glicogen (n’activen el catabolisme a glucosa), mentre que la insulina (secretada també pel pàncrees) activa l’anabolisme del glicogen i n’inhibeix el catabolisme.
Greixos dels aliments
Sals biliars que actuen en el duodè
Lípids emulsionats
Lipases intestinals
Àcids grassos i glicerina
En els animals, la biosíntesi dels lípids es pot realitzar a partir dels aliments (font exògena) o a partir dels glúcids (font endògena).
Els lípids dels aliments són hidrolitzats en el tub digestiu a glicerina i àcids grassos, a partir dels quals es poden sintetitzar nous lípids.
A la paret intestinal, els àcids grassos i la glicerina s’acoblen de nou per formar lípids, els quals, transportats pels vasos quilífers, seran posteriorment repartits per la sang als diversos teixits, especialment a l’adipós. Els animals acumulen en forma de triglicèrids l’excés de glúcids que no poden utilitzar ni emmagatzemar en forma de glicogen.
L’anabolisme de nous lípids requereix la síntesi de glicerina i dels àcids grassos, que es realitza per vies metabòliques diferents.
La glicerina se sintetitza a partir de molècules de glucosa, en una sèrie de reaccions en part comunes a les de la glucòlisi.
De la biosíntesi de nous àcids grassos cal destacar els aspectes següents:
– Es produeix al citosol de les cèl·lules animals i als cloroplasts de les cèl·lules dels vegetals superiors.
– No es tracta de la simple reversió del catabolisme dels àcids grassos, és a dir, de la β-oxidació.
Gliceraldehid-3-fosfat
– La cadena hidrocarbonada d’un nou àcid gras s’inicia a partir del grup acetil de l’acetil-CoA, el qual s’origina als mitocondris i és un metabòlit essencial en diverses rutes metabòliques.
– El creixement de la cadena hidrocarbonada es produeix per successives addicions a l’acetil-CoA de grups de dos àtoms de carboni aportats pel malonil-CoA, metabòlit derivat de l’acetil-CoA. Aquest procés és catalitzat per un complex multienzimàtic, conegut amb el nom de sistema de la sintetasa de l’àcid gras.
– El procés global és reductor i necessita l’aportació de NADPH com a donador d’electrons.
Biosíntesi de la glicerina.
Biosíntesi dels àcids grassos.
Àcid oxoglutàric
Àcid glutàmic
Àcid aspàrtic
Àcid oxalacètic
Àcid pirúvic
Gliceraldehid-3-fosfat
Biosíntesi dels aminoàcids no essencials.
La capacitat de sintetitzar els vint aminoàcids que es poden trobar a les proteïnes varia d’uns organismes als altres. Els aminoàcids que un organisme no pot sintetitzar s’anomenen essencials i cal ingerir-los amb la dieta. En el cas de l’ésser humà i dels altres mamífers són nou.
Tots els organismes requereixen àtoms de nitrogen tant per a la síntesi dels aminoàcids com per a la d’altres compostos orgànics, com ara els nucleòtids. Aquests àtoms provenen, en darrer terme, del nitrogen atmosfèric, el qual no pot ser aprofitat directament per la major part d’organismes.
Alguns bacteris i nombrosos cianobacteris, en canvi, poden reduir el nitrogen atmosfèric a amoníac (NH3), un compost químicament reactiu. Aquests microorganismes fan servir el nitrogen atmosfèric en la síntesi de compostos nitrogenats i l’excreten a l’aigua i al sòl. Les plantes prenen el nitrogen del sòl en forma de nitrats i d’amoníac, i el fan servir per sintetitzar aminoàcids i altres compostos nitrogenats. Finalment, els animals obtenen la major part del nitrogen que necessiten ingerint plantes.
En la biosíntesi dels aminoàcids, els grups amino procedeixen de l’àcid glutàmic, que els transfereix mitjançant reaccions de transaminació. Els esquelets d’àtoms de carboni els aporten diferents metabòlits: l’àcid pirúvic, el gliceraldehid-3-fosfat i els àcids cetoglutàric i oxalacètic.
La síntesi dels aminoàcids està acoblada a la glucòlisi i al cicle de Krebs. Pel que fa als aminoàcids essencials, cal satisfer les necessitats nutritives amb la dieta, ja sigui a partir de proteïnes d’origen animal o bé vegetal.
Sovint, però, les proteïnes d’origen vegetal són pobres en determinats aminoàcids essencials i s’han de combinar diversos vegetals per obtenir una dieta equilibrada. Per exemple, l’arròs amb fesols, típic de moltes cuines tradicionals americanes, és una combinació nutritiva excel·lent, ja que mentre que l’arròs és pobre en lisina i ric en triptòfan i metionina, els fesols tenen molta lisina i poc triptòfan i metionina.
9.20. Copia aquest quadre comparatiu de la biosíntesi dels glúcids en les cèl·lules autotròfiques i les heterotròfiques i completa’l.
Biosíntesi dels glúcids
Cèl·lula autòtrofa Cèl·lula heteròtrofa
Nom
Compartiment cel·lular on té lloc
Elements necessaris
Tipus d’energia que utilitza
9.21. Quins són els polisacàrids de reserva en els animals i en els vegetals? Quins monòmers els formen?
9.22. Respon a les preguntes següents, que fan referència a la gluconeogènesi i a la glucòlisi:
a) Quina de les dues és una via catabòlica i quina, en canvi, és una via anabòlica?
b) En quins compartiments cel·lulars tenen lloc?
c) Quins són els productes inicials i finals en ambdós processos?
d) Són semblants, energèticament, els dos processos?
9.23. Enumera quines hormones, a més dels enzims, intervenen en el metabolisme del glicogen. Explica l’acció d’aquestes hormones i els indrets on actuen.
9.24. Respon a les preguntes següents:
a)De quins monòmers cal disposar per formar nous lípids?
b)On té lloc la biosíntesi de nous àcids grassos?
c)Quin metabòlit és necessari en la formació de les cadenes hidrocarbonades dels àcids grassos?
9.25. Tots els organismes necessiten àtoms de nitrogen per a la síntesi d’aminoàcids.
a)Quina és la font d’aquests àtoms?
b)Quins organismes són capaços d’aprofitar el nitrogen atmosfèric?
c) Com obtenen, les plantes i els animals, els àtoms de nitrogen?
9.26. Què són els aminoàcids essencials? Indica el nom de cinc aminoàcids essencials per a l’ésser humà. Explica què cal fer per tenir-ne en quantitats suficients.
L’atmosfera és un important reservori de nitrogen, per bé que pocs organismes el poden utilitzar directament.
9.27. Digues en quina fase –lumínica o fosca– es produeixen els processos fotosintètics següents:
a) excitació de la clorofil·la; b) cadena de transport electrònic; c) fosforilació no cíclica; d) síntesi de NADPH; e) consum d’ATP; f) oxidació de NADPH; g) fotòlisi de l’aigua; h) alliberament d’oxigen; i) consum de diòxid de carboni.
9.28. Digues si les frases següents són certes o falses:
a) Durant la fotosíntesi es consumeix clorofil·la i es produeix aigua.
b) Durant la fotosíntesi es consumeix aigua i es produeix CO2.
c) Durant la fotosíntesi es consumeix CO2 i es produeix clorofil·la.
d) Durant la fotosíntesi es consumeix aigua i es produeix O2.
e) Durant la fotosíntesi es consumeix glucosa i es produeix O2
9.29. Digues si les frases següents són certes o falses:
a) Als tilacoides es produeix CO2 i a l’estroma es consumeix aigua.
b) Als tilacoides es produeix NADP+ i a l’estroma es consumeix O2.
c) Als tilacoides es produeix ATP i es consumeix NADPH.
d) Als tilacoides es produeix glucosa i es consumeix O2
e) Als tilacoides es produeix O2 i es consumeix ATP.
9.30. Si s’il·lumina un cultiu d’algues verdes en absència de CO2 i després s’incuba amb 14CO2 en la foscor, en poc temps el 14C passa a formar molècules de glucosa, però aquesta conversió s’atura poc després.
a) D’aquestes observacions, es pot deduir l’existència de dues fases en la fotosíntesi?
b) Per què s’atura la formació de glucosa?
9.31. Si, en condicions experimentals, s’il·lumina una planta de blat de moro en presència de 14C i es procedeix ràpidament a investigar la presència del
Hora del dia
Concentració
14C, s’observa que al cap d’un segon aquell isòtop es troba en molècules de malat, oxalacetat o aspartat, mentre que tarda gairebé un minut a aparèixer en el 3-fosfoglicerat. Com s’explica, tot plegat?
9.32. En les plantes C4, les cèl·lules del mesòfil contenen, en els seus cloroplasts, els dos tipus de fotosistemes (el fotosistema I i el II), mentre que les cèl·lules de la beina només contenen unitats del fotosistema I.
a) Explica la ruta C4 de les plantes tropicals d’acord amb aquesta observació.
b) Digues quines cèl·lules alliberen oxigen en aquestes plantes.
9.33. Ordena aquestes estructures segons la seva grandària: tilacoide, molècula de clorofil·la, fitol, fotosistema, cèl·lula vegetal, cloroplast.
9.34. El bioquímic alemany Otto Heinrich Warburg va estudiar la fotosíntesi i cregué descobrir que l’oxigen desprès per les plantes procedeix de la fotòlisi del diòxid de carboni. Per demostrar-ho, es fa créixer una planta en presència d’aigua amb l’oxigen marcat radioactivament, i en presència de CO2 amb l’oxigen no marcat. Digues si l’oxigen alliberat estarà marcat radioactivament o no. Raona la resposta.
9.35. Les diferents longituds d’ona de la llum visible no arriben a la mateixa profunditat dins el mar. La llum blava és la que hi penetra més. Explica com pot afectar això la distribució de les algues en un fons costaner.
9.36. En un hivernacle on es conreen plantes, mesurem la concentració del CO2 de l’aire, repetim la mesura cada tres hores durant un dia sencer i apuntem els resultats en un quadre com el que hi ha a sota.
a)Representa aquestes dades en un gràfic.
b)Explica els canvis en la concentració de CO2 i indica en quines hores es va produir la fotosíntesi i en quines va predominar la respiració.
c)En el cas que mesuréssim la concentració d’oxigen, digues a quina hora en trobaríem el valor més alt. 2 5 8 11 14 17 20 23
1. Llegeix el text següent i contesta a les preguntes que hi ha a continuació:
En la primera meitat del segle XVII, el metge belga Jan Baptista van Helmont cultivà un salze en un recipient amb terra al qual subministrava només aigua de pluja i observà que, en cinc anys, l’arbre havia crescut considerablement malgrat que la quantitat de terra del recipient no havia disminuït de forma significativa. Van Helmont va concloure que les substàncies de l’arbre procedien de l’aigua utilitzada per humitejar la terra. L’any 1727, el botànic anglès Stephen Hales publicà un llibre on afirmava que les plantes utilitzen principalment aire per alimentar-se.
Per la seva part, entre 1771 i 1777, el famós químic anglès Joseph Priestley (un dels descobridors de l’oxigen) realitzà una sèrie d’experiments relatius a la combustió i a la respiració, en què va arribar a la conclusió que les plantes verdes podien invertir el procés respiratori dels animals. Priestley cremà una espelma en un volum d’aire confinat i demostrà que l’aire resultant no podia mantenir la combustió i que en aquell aire tampoc no hi podia sobreviure un ratolí. En canvi, una branqueta verda de menta es mantingué viva, durant setmanes, en aquell aire. Al final d’aquell període de temps, Priestley comprovà que l’espelma podia tornar a cremar en aquell aire i que el ratolí podia respirar l’aire reactivat. Actualment sabem que l’espelma, en cremar, utilitzava tot l’oxigen de l’aire, que es tornava a enriquir en oxigen com a conseqüència de la fotosíntesi de la menta verda. Uns anys després, el metge holandès Jan Ingen-Housz descobrí que les plantes alliberen oxigen únicament a la llum del sol i també que són només les parts verdes de les plantes les que realitzen el procés.
El suís Jean Sénébier confirmà les observacions d’Ingen-Housz i observà, a més, que les plantes utilitzen diòxid de carboni «dissolt en aigua» per alimentar-se. A principi del segle XIX, un altre suís, Nicolas Théodore de Saussure, estudià les relacions quantitatives entre el CO2 absorbit per la planta i la quantitat de matèria orgànica i de O2 produïts, i arribà a la conclusió que durant el procés d’incorporació del CO2, les plantes també consumien aigua.
L’any 1817, dos químics francesos, Pierre Pelletier i Joseph Caventou, aïllaren la substància verda de les fulles i la denominaren «clorofil·la». Un altre esdeveniment en la història de la fotosíntesi va tenir lloc l’any 1845, quan Robert von Mayer, metge alemany, enuncià que les plantes transformen l’energia de la llum solar en energia química. Cap al 1850 el fenomen de la fotosíntesi podia representar-se per aquesta relació:
CO2 + H2O + llum-planta verda = O2 + matèria orgànica + energia química
Va ser el fisiòleg francès Jean-Baptiste Boussingault qui va portar a terme determinacions precises de la relació del CO2 consumit respecte al O2 durant la fotosíntesi; l’any 1864, aquest autor va comprovar que aquesta relació fotosintètica és pràcticament la unitat. El mateix any, un botànic alemany, Julius von Sachs, demostrà que durant la fotosíntesi es formen grans de midó; Sachs va guardar unes quantes fulles verdes en la foscor durant unes quantes hores a fi i efecte que es consumís tot el midó que poguessin contenir. Després, exposà a la llum la meitat de la fulla i l’altra meitat la mantingué en la foscor. Passat un cert temps, posà tota la fulla en contacte amb vapor de iode. Mentre que la part il·luminada agafava una coloració violeta fosc, deguda a la formació del complex midó-iode, l’altra meitat no.
La relació directa entre l’alliberament d’oxigen i els cloroplasts fou demostrada per Theodor Wilhelm Engelmann l’any 1880, quan va concloure que les clorofil·les són els pigments actius fotoreceptors en la fotosíntesi. El nivell de coneixements sobre la fotosíntesi a principi d’aquest segle podia representar-se per l’equació següent:
(CO2)n + H2O + llum-planta verda = (O2)n + midó + + energia química
Malgrat tot, la bioquímica encara no havia avançat prou per entendre el mecanisme de la reducció del diòxid de carboni.
D. HALL iK. RAO, Fotosíntesi
a) Digues si Jan Baptista van Helmont estava equivocat i per què.
b) Què demostra cada un dels experiments de Priestley?
c) Què va demostrar Sachs amb els seus experiments?
d) Com es pot mesurar el quocient CO2/O2 fotosintètic? Per què té importància?
e) Després de llegir el text s’intueix que en l’estudi de la fotosíntesi ha tingut molta importància l’anàlisi de la composició de l’aire. Consulta en una enciclopèdia mots com ara flogist, oxigen, diòxid de carboni, gas, etc., o noms com ara Joseph Priestley o Antoine Laurent Lavoisier, i amplia la informació d’aquest text de Hall i Rao.
f) El científic català Antoni de Martí i Franquès també estudià la composició de l’aire. Busca informació sobre la seva vida i la naturalesa dels seus experiments.
g) Completa el contingut del text d’aquesta activitat explicant quins descobriments han aportat a la comprensió de la fotosíntesi els científics Robert Hill, Daniel Arnon i Melvin Calvin al llarg del segle XX
h) Explica per què (amb relació a la tecnologia emprada) aquests darrers descobriments no s’haurien pogut efectuar en una època passada.
2. Llegeix el text següent i contesta a les preguntes que hi ha a continuació:
Els espermatòfits [plantes superiors] són vegetals particularment adaptats al medi terrestre, però aquest no és uniforme arreu, sinó que varia profundament en latitud i en altitud, i encara segons la roca mare, el clima, etc. Cada planta respon individualment a les condicions del medi, i per aquesta raó viu només en certs ambients. La mateixa distribució dels espermatòfits és una conseqüència de la seva capacitat de resposta als factors ambientals, tant als actuals com als històrics.
[…] Les plantes superiors, essencialment terrestres, tenen unes exigències més o menys estrictes pel que fa als factors necessaris per a la seva vida. Hi ha, en tots els casos, uns llindars (un mínim i un màxim) variables d’una planta a l’altra, més enllà dels quals la supervivència ja no és possible. El clima i el sòl engloben la majoria dels factors (aigua, temperatura, llum, nutrients, etc.), però cal tenir present també les repercussions causades per l’activitat dels altres organismes.
[…] Aquests factors es manifesten de vegades mitjançant uns canvis adaptatius en la morfologia de la planta.
La temperatura, les precipitacions i la radiació solar, però també el vent i les impureses de l’aire, són els factors climàtics amb una incidència més gran sobre els vegetals, particularment els terrestres.
Història Natural dels Països Catalans
a) Relaciona amb la fotosíntesi l’adaptació de les plantes respecte al medi on viuen, de la qual parla el text.
b) El text afirma: «La mateixa distribució dels espermatòfits és una conseqüència de la seva capacitat de resposta als factors ambientals». Explica com s’adapten les plantes als climes més àrids i als més freds i relaciona-ho amb la fotosíntesi de les plantes que hi estan adaptades.
c) El text afirma que l’aigua, la temperatura, la llum i els nutrients són alguns dels factors climàtics importants per a la supervivència de les plantes. Explica quina relació tenen amb la fotosíntesi i com hi estan relacionats.
3. Copia l’esquema de sota, que representa les fases de la fotosíntesi, i completa’l indicant-hi com relacionaries els conceptes següents: glucosa i altres components orgànics; ADP + Pi; ATP; CO2; NADP+; NADPH; H2O; hν; O2; reaccions fosques; reaccions lumíniques; sol; estroma; membrana del tilacoide; cloroplast; citosol.
a) Observació microscòpica dels orgànuls fotosintetitzadors.
b) Estudi de la localització dels estomes i de la seva funció.
c) Extracció i separació dels pigments fotosintètics.
d) Observació de la producció fotosintètica d’oxigen.
e) Detecció del midó resultant de la fotosíntesi.
Material
–Microscopi.
–Portaobjectes i cobreobjectes.
–Micròtom de mà, navalla histològica.
–Morter i mà de morter.
–Vas de precipitats, tubs d’assaig i gradeta, proveta,càpsula de Petri, cristal·litzador gran.
–Embuts, pinça de nou, escalfador.
–Paper de filtre, paper de cromatografia.
–Elodea, molsa, patata, fulles fresques.
–Sorra.
–Aigua destil·lada i aigua corrent.
–Lugol, clorur de cobalt, alcohol etílic, èter de petroli, acetona, dicloretà.
–Bicarbonat sòdic i potàssic.
–Plastilina.
En organismes com ara l’elodea o les molses s’hi poden identificar fàcilment cloroplasts amb una morfologia típica. Les fulletes d’aquests vegetals són prou translúcides per no haver de requerir cap manipulació prèvia. S’agafa una fulleta de molsa o d’elodea i es col·loca entre el portaobjectes i el cobreobjectes juntament amb una goteta d’aigua.
a) Quin aspecte tenen els cloroplasts?
b) Quants n’hi ha, aproximadament, en una cèl·lula?
c) Com estan disposats?
D’altra banda, en la patata es poden veure fàcilment els amiloplasts, que constitueixen el magatzem on s’acumula el midó. Amb una navalla i un micròtom, talla una patata en rodanxes primes que observaràs al microscopi.
d) Què passarà si hi afegeixes una goteta de lugol abans de posarhi el cobreobjectes?
b)Per on transpiren les plantes?
El clorur de cobalt és una substància de color blau, però que en humitejar-se es torna de color taronja. Per això mateix s’utilitza com a dessecant. Prepara una dissolució amb una petita quantitat d’aquest producte, remulla-hi unes tiretes de paper de filtre i deixa-les assecar. Un cop ben seques, aquestes tiretes de paper tenen un color blau (el del clorur de cobalt sec). Si les poses sobre les fulles d’una planta, tal com mostra el dibuix, t’indicaran els punts per on aquesta treu vapor d’aigua, ja que hi apareixeran unes taquetes.
a) Digues de quin color són les taquetes i per què.
b) A quina estructura del vegetal corresponen els punts de color?
c) On són més freqüents els punts de color, a l’anvers o al revers?
c)Extracció i estudi dels pigments fotosintètics
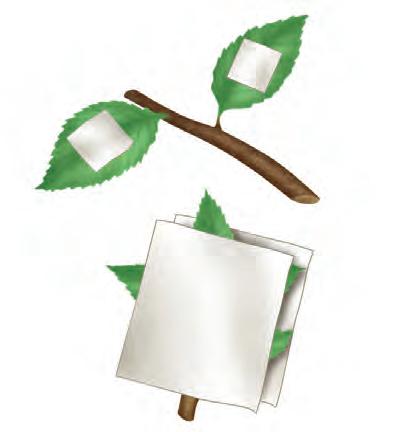
Posa en un morter amb sorra neta uns 40cm3 d’alcohol etílic (o encara millor, una mescla formada per un 85% d’èter de petroli, un 10% d’acetona i un 5% de dicloretà) i trossos de fulles fresques. Després d’haver mòlt les fulles, filtra el líquid i recull-lo en un vas de precipitats. En aquest recipient, es pot observar el fenomen de la fluorescència: per transparència o refracció dóna color porpra. Per què es produeix?
Reparteix el líquid resultant entre un tub d’assaig i una proveta. Penja en la proveta un tros de paper de cromatografia de manera que l’extrem toqui el líquid. Els pigments ascendiran pel paper, però a velocitats diferents. Per què? Com queden separats els pigments? Quins es poden identificar?
Finalment, afegeix 4 o 5 cm3 d’aigua destil·lada al tub d’assaig. Després de remenar la mescla, deixa-la reposar una estona a la gradeta. Els pigments s’han repartit. Per què? De quina manera?
d)Les plantes desprenen oxigen?
Procediment
Omple d’aigua un cristal·litzador o vas gros de precipitats, afegeix-hi una culleradeta de bicarbonat sòdic o potàssic i posa-hi unes branquetes d’elodea al fons. Tal com mostra la il·lustració, amb tres boletes de plastilina col·locades al fons del cristal·litzador subjecta un embut de cap per avall amb l’elodea a dins. Omple del tot d’aigua un tub d’assaig i, tapant-lo amb el dit gros perquè no en surti gens, col·loca’l en posició invertida com en l’esquema. Fixa el muntatge amb una pinça de nou i un suport.
Col·loca l’experiment en un indret ben il·luminat i que no sigui fred.
Munta un altre experiment idèntic i deixa’l en un indret que estigui completament a les fosques.
a) Què observes en els muntatges un cop han transcorregut unes hores? Compara els dos experiments.
b) A què atribueixes el resultat observat?
c) Com podries demostrar la presència d’oxigen?
d) Per a què serveix el bicarbonat?
És possible estudiar experimentalment la síntesi del midó després de la fotosíntesi en el mateix òrgan fotosintètic (la fulla). Abans, però, se n’ha d’extreure la clorofil·la i altres pigments que, altrament, emmascararien el resultat. Per fer-ho, agafa la fulla verda, fresca, que vulguis analitzar i submergeix-la en aigua bullent. Seguidament, col·loca la fulla en un vas de precipitats ple d’alcohol etílic i col·loca’l dins d’un altre recipient més gran ple d’aigua, com si fos al bany maria. Fes bullir l’aigua fins que tota la clorofil·la hagi passat a l’alcohol i la fulla hagi quedat descolorida. Aleshores, treu la fulla, renta-la amb aigua i sotmet-la a la prova del lugol en una càpsula de Petri (o similar), amb una mica d’aigua destil·lada.
Si utilitzes una fulla variegada (blanca i verda), com ara les de l’heura o d’un altre vegetal d’aquest tipus, podràs afinar més i comprovar si el midó està repartit per tota la fulla o si només n’hi ha a les zones verdes, on hi ha la clorofil·la.
Comença per dibuixar la fulla intacta, procurant representar de forma real les parts verdes i les que no ho són. Després, sotmet la fulla al tractament descrit i, un cop feta la prova del lugol, dibuixa el resultat i compara’l amb el dibuix de la fulla intacta.
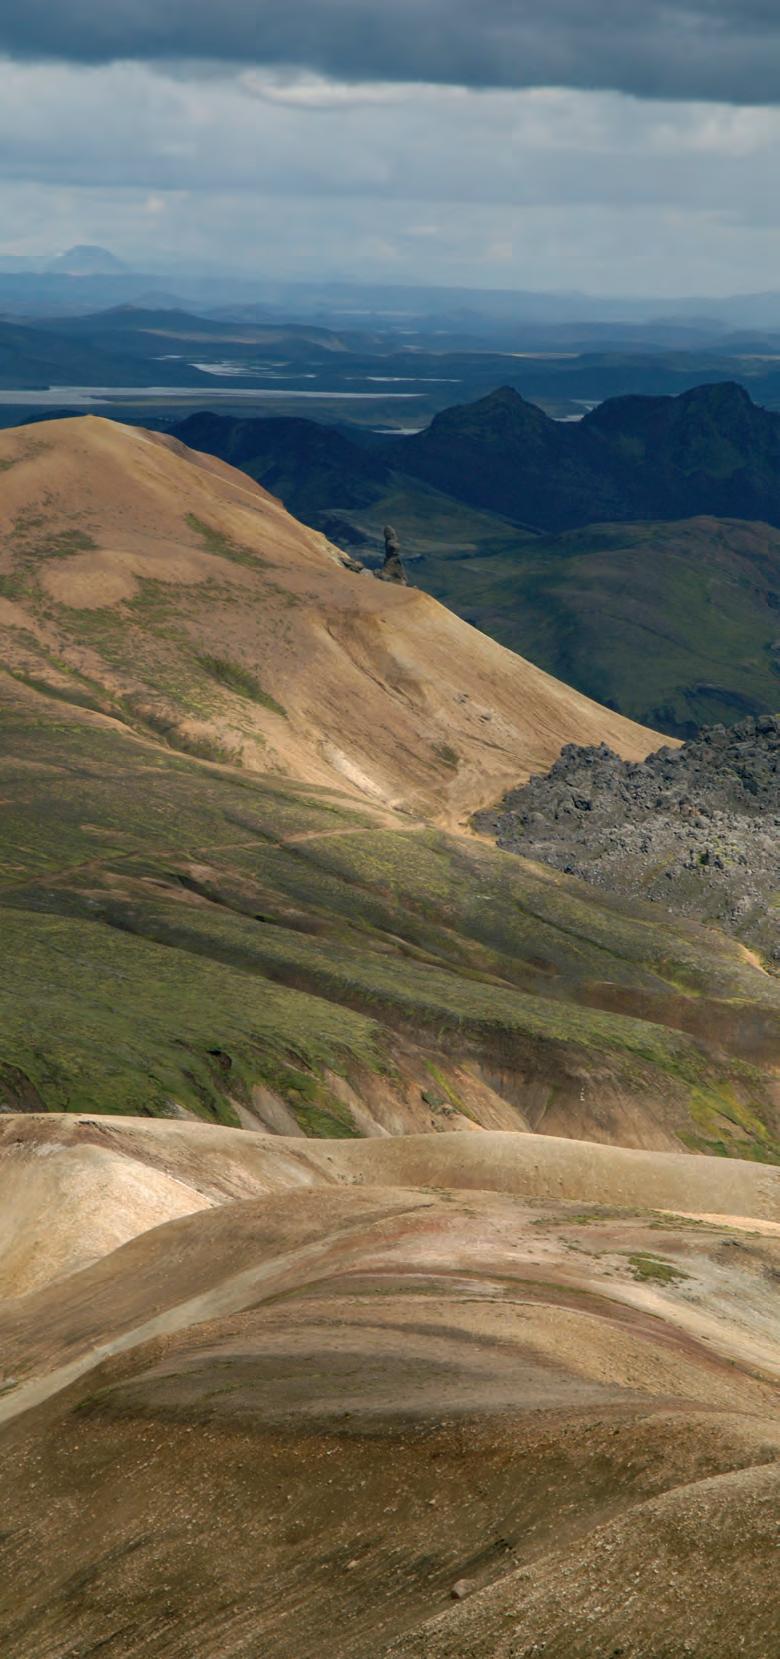
1.Història de les idees evolucionistes
2.Les proves de l’evolució Esquema
És un fet ben notable que hi hagi tantes plantes de les mateixes espècies vivint a les regions nevades dels Alps i dels Pirineus i a les parts més septentrionals d’Europa. La passada influència del clima glacial ho explica.
CHARLES R. DARWIN, L’origen de les espècies
Paisatge d’Islàndia.
L’acceptació de l’evolució biològica es fonamenta en la publicació, l’any 1859, de L’origen de les espècies per part del naturalista anglès Charles R. Darwin. La teoria de l’evolució constitueix la columna vertebral de les ciències de la vida. L’evolució dels éssers vius es considera avui dia una realitat científicament inqüestionable, i, sense aquesta teoria, actualment la biologia seria poc més que un caos de dades sense sentit.
El que separa radicament l’evolucionisme de Darwin i de Wallace de tot el pensament anterior és l’aplicació als éssers vius de la noció de contingència.
FRANÇOIS JACOB, La lògica del vivent (1970)
L’explicació del caràcter evolutiu dels éssers vius, coneguda amb el nom de teoria de l’evolució,té un estatus singular, a cavall de les ciències experimentals i les històriques. Es tracta d’una explicació científica ja que es basa en mecanismes ecològics i genètics coneguts i contrastats, als quals es poden aplicar els criteris de validació de les ciències experimentals. Per aquest motiu, la teoria de l’evolució, en les seves línies essencials, és acceptada per tota la comunitat científica, la qual discuteix, partint dels fets i les observacions, quines són les hipòtesis concretes més plausibles, com és habitual en el quefer de les ciències experimentals.
Si aquesta teoria té detractors no és pas per motius científics, ja que els grups que en són contraris ho són més aviat per raons ideològiques que sovint es fonamenten en l’integrisme religiós.
Milers de pàgines han estat escrites sobre l’evolucionisme […]. La teoria de l’evolució, en la seva crua forma de supervivència del més apte o «darwinisme social», tal com de manera eufemística hom l’anomenà, ha estat utilitzada per designar el programa racial de Hitler, la brutal opressió dels més pobres i molts altres exemples d’inhumanitat de l’ésser humà contra l’ésser humà. Té aquesta teoria, doncs, alguna cosa positiva per oferir-nos? Algunes persones la troben profundament depressiva, ja que interpreten les teories genètiques i evolutives com a proves que som el resultat d’un atzar orb, únicament experiments insubstancials de química de proteïnes.
La meva contestació és que, personalment, no trobo més depressiu el fet de ser un experiment químic que un experiment ètic, tal com resulta del missatge cristià interpretat des d’un punt de vista igualment nihilista o excloent. És cert que la teoria de l’evolució no és un substitutiu de la religió, tot i que alguns ho han intentat. Tanmateix, conté un missatge sobre la nostra relació amb la resta de la natura que és més positiu que no pas el contingut de l’Antic Testament: l’home és únic, fet a imatge de Déu, i per aquest motiu la resta de la creació té com a finalitat ser explotada per ell. Ens portarà encara molt de temps eliminar aquesta actitud, tot i que els seus resultats són cada dia més intempestius.
La revolució copernicana, iniciada en el segle XVI pel polonès Nicolau Copèrnic, suposà l’inici de l’astronomia moderna, la qual abandonà la idea que la Terra era el centre de l’Univers, tal com fins aleshores s’havia cregut.
De manera similar, la revolució darwiniana suposà el començament de la biologia moderna, segons la qual l’ésser humà ja no és el centre de la creació. La il·lustració representa el frontispici d’una enciclopèdia d’història natural publicada a Barcelona l’any 1872.
Per a l’estudi i la comprensió de l’evolució, cal distingir amb precisió les proves dels fets i dels mecanismes.
El missatge de l’evolució és que no som pas únics: som animals, membres del mateix llinatge que el corc de la fusta i la musaranya.
Som mamífers socials i, com a tals, el nostre designi no és únicament la reproducció, per tal com el nostre orgull racial o el nostre patriotisme i la nostra dèria social poden no ser pas més lloables que la lleialtat tribal dels babuïns. La nostra singularitat rau en els nostres cervells, llengües i mans, que ens han permès acumular coneixements (o reduir ignorància) i aprofitar-nos de l’experiència de les generacions anteriors d’una forma que cap altra espècie ha sabut fer. És el sentit del passat i l’anticipació del futur, derivats d’aquest coneixement, allò que ens dóna el control sobre les bèsties del camp. I si estem sols a l’univers, hi estem en el sentit que som els nostres amos i no hi ha qui ens hagi d’amonestar, ja que si el futur és en algun indret, aquest indret són els nostres caps.
Ara bé, en la mesura que la teoria de l’evolució estudia el passat, determinats fets evolutius no poden ser objecte de demostració científica. És per aquest motiu que certs aspectes de les explicacions evolutives de la vida són –i ho continuaran sent– objecte de debat. Perquè, com a fets històrics que són, les hipòtesis interpretatives no poden ser validades o invalidades amb els criteris propis de les ciències experimentals.
Fòssils d’ammonits.
Tal com s’entén ara, es pot dir, de manera molt resumida, que l’evolució dels organismes es genera, juntament amb l’acció d’altres mecanismes, mitjançant la selecció natural de les diferències hereditàries que sorgeixen aleatòriament en cada generació. Aquelles diferències que atorguen als seus portadors més adaptació al medi es multiplicaran i les perjudicials tendiran a ser eliminades.
L’ésser humà, com a espècie biològica, és fruit també d’aquell procés evolutiu. L’Homo sapiens es va originar a partir d’avantpassats del grup dels hominoides, de l’ordre dels mamífers primats, gràcies a un procés d’hominització que es va desenvolupar en temps geològics molt recents i que va comportar, bàsicament, canvis en la dentadura, l’adquisició de la posició erecta permanent i l’augment de la capacitat i la complexitat de l’encèfal.
Una correcta comprensió del fenomen evolutiu implica distingir amb precisió les proves dels fets i dels mecanismes
Les idees evolucionistes respecte del món orgànic són molt antigues i ja es troben en les obres d’alguns filòsofs de la Grècia clàssica, com ara Anaximandre o Empèdocles, els quals ens mostren unes interpretacions dinàmiques del món que, però, no tenen cap base material i són, per tant, simples especulacions filosòfiques.
Durant molts segles –de fet fins al final del segle XVIII– s’acceptà el caràcter fix de les espècies (fixisme), les quals, d’acord amb una interpretació literal dels textos sagrats de la tradició judeocristiana, se suposaven immutables des del moment de la seva creació divina (creacionisme). Aquest pensament es pot comprovar fins i tot en les obres de dos dels més grans naturalistes del segle XVIII i XIX: el botànic suec Carl von Linné i el francès Georges Cuvier, que destacà pels seus estudis d’anatomia comparada. Davant la realitat cada cop més inqüestionable de fòssils que demostraven que en el passat havien existit animals diferents dels actuals, alguns naturalistes (entre ells el mateix Cuvier) interpretaren la història de la terra
Tapís del segle XI que representa la Creació i que es conserva a la catedral de Girona.
Alguns creuen en la possibilitat indefinida d’alteració de les formes dels cossos organitzats i pensen que, amb el concurs dels segles i dels hàbits, totes les espècies podrien canviar les unes en les altres, o derivar-se d’una sola d’entre elles. Això no obstant, se’ls pot respondre, en el seu propi idioma, que si les espècies han canviat gradualment, haurien de trobar-se pistes de tals canvis graduals; és a dir, per exemple, que entre els paleoteris i les espècies actuals s’haurien de descobrir algunes formes intermèdies, circumstància que fins ara no s’ha donat. Per què les entranyes de la Terra no han conservat de cap manera els monuments d’una genealogia tan curiosa si no és perquè les espècies d’abans eren tan constants com les nostres i perquè la catàstrofe que les va destruir no els va deixar temps de lliurar-se a la seva variació?
L’última d’aquestes catàstrofes, la que per un doble moviment ha inundat i ha tornat a deixar en sec els continents actuals […], ha deixat als països del nord cadàvers de grans quadrúpedes que el gel ha preservat, i que s’han conservat fins als nostres dies amb el seu pèl, la seva carn i la seva pell. Si no s’haguessin congelat tan aviat com van morir, la putrefacció els hauria destruït, mentre que, d’altra banda, aquells gels eterns no ocupaven abans els llocs on aquells animals van ser sorpresos per la mort, ja que no haurien pogut viure amb aquelles temperatures.
GEORGES CUVIER,Discurs sobre els esquelets fòssils (1812)
Jean-Baptiste de Monet, cavaller de Lamarck, fou un dels primers naturalistes a oferir, al començament del segle XIX, una visió evolutiva o transformista del món viu. Tanmateix, no n’aportà proves i els mecanismes que suggeria eren, bàsicament, erronis. Per això el seu pensament no va ser pres prou en consideració.
com una successió de diluvis bíblics (catàstrofes) i noves creacions (teoria del catastrofisme). Aquesta teoria era un intent d’oposar-se al nou pensament, un exponent del qual era el zoòleg francès Georges-Louis Leclerc, comte de Buffon, que admetia la transformació gradual dels éssers vius sota la influència del medi.
La concepció evolutiva del món viu (evolucionisme, teoria de la descendència o transformisme) és el producte intel·lectual dels segles XVIII i XIX i, en particular, de la notable acumulació de coneixements que, sobre els éssers vius, van aconseguir de reunir els científics d’aquella època. Ara bé, una cosa és la concepció evolucionista del món viu i una altra, l’explicació raonada del funcionament d’aquesta evolució i dels seus mecanismes. Entre els capdavanters de les explicacions evolutives de la vida destaquen el francès Jean-Baptiste de Monet, cavaller de Lamarck, i l’anglès Charles Robert Darwin.
La primera teoria positiva sobre l’evolució, que conjuminava una interpretació transformista del món viu amb un conjunt d’hipòtesis que pretenien explicar-la, la va formular el francès Jean-Baptiste de Monet, cavaller de Lamarck (1744-1829), en la seva obra Filosofia zoològica, publicada l’any 1809.
La concepció de Lamarck, o lamarckisme, acceptava la teoria de la generació espontània i la recolzava sobre els pressupòsits següents:
El Megatherium americanum era un mamífer gegant que va viure a l’actual Argentina durant el plistocè.
a) El progrés és una propietat inherent de la natura viva que, de manera continuada, s’efectua sota la influència del medi.
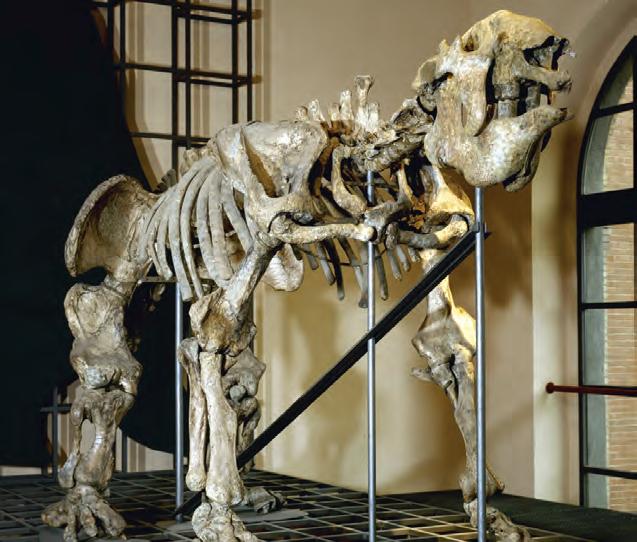
b) Tots els éssers vius són productes de la natura, que els ha format al llarg del temps. La natura torna a començar cada dia i forma directament els organismes més simples per generació espontània.
c) L’ús freqüent i sostingut d’un òrgan el desenvolupa, mentre que la manca d’ús el debilita progressivament i acaba fent-lo desaparèixer (llei de l’ús i del no-ús).
d) Tota pèrdua o adquisició deguda a la influència del medi es manté a través de les generacions successives (llei de l’herència dels caràcters adquirits).
La teoria de Lamarck és errònia, començant per la generació espontània
i acabant per les seves «lleis», ja que mai no s’ha pogut demostrar científicament, malgrat haver-se intentat. Ara bé, aquesta manera de pensar no es pot negar que té un cert atractiu i resulta còmoda, motiu pel qual moltes persones li donaren crèdit i no s’esforçaren a comprendre els mecanismes reals de l’evolució: la mutació, la variabilitat i la selecció natural. Cal reconèixer a Lamarck l’esforç que va fer, en una època tan primerenca, per explicar l’origen de la vida i el fet d’haver posat de manifest l’enorme influència del medi sobre els éssers vius, encara que no sigui ben bé tal com ell pensava. Lamarck intentà explicar uns «fets» basant-se en els «mecanismes» de l’ús i del no-ús, la generació espontània, el progrés i l’herència dels caràcters adquirits.
1.2. Darwin i la selecció natural
La primera formulació completa i, en general, correcta de l’evolució dels éssers vius va ser la del naturalista anglès Charles R. Darwin (18091882), que va donar a conèixer, al mateix temps que Alfred Russel Wallace (1823-1913), la seva teoria en unes comunicacions a la Linnean Society de Londres l’any 1858. L’obra cabdal de Darwin va ser L’origen de les espècies, publicada l’any 1859. Hi aporta innombrables proves de l’evolució i hi descriu la selecció natural, la qual considera el motor de l’evolució, ja que actua sobre la variabilitat hereditària que hi ha en les poblacions naturals.
L’origen de les espècies va ser el fruit de les importants observacions sobre la distribució geogràfica dels éssers vius que Darwin va fer durant el transcurs del seu viatge de gairebé cinc anys a bord del Beagle (des del 27 de desembre de 1831 fins al 2 d’octubre de 1836), en què va estudiar, per exemple, la fauna i la flora de les illes Galápagos. Amb aquelles observacions va acabar d’extreure les conclusions evolutives que ja li rondaven pel cap arran dels seus estudis sobre la selecció artificial de varietats de plantes i animals domèstics, sobretot des que havia llegit les obres de Thomas Robert Malthus –que en el seu Assaig sobre la població, de l’any 1798, exposava una teoria de la població fonamentada en la tesi, fatalista, que, mentre que la població augmenta en progressió geomètrica, els recursos per mantenir-la ho fan només en progressió aritmètica– i els Principis de geologia de l’escocès Charles Lyell, publicats l’any 1830, el qual era partidari de l’actualisme. Per explicar els canvis que han tingut lloc en la superfície terrestre, n’hi ha prou de suposar –venia a dir Lyell– que les mateixes causes que actuen ara (d’aquí el nom) ho han fet durant períodes de temps molt llargs, sense necessitat de recórrer a cap de les teories catastrofistes (diluvis, extincions, etc.) fins aleshores vigents.
L’origen de les espècies és d’una importància extraordinària, sobretot per dues aportacions capitals: la primera és que presenta nombroses proves de l’evolució i la segona és que proposa i explica el
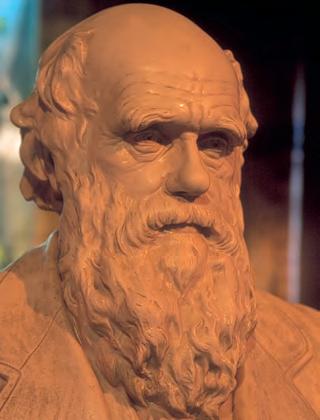
Bust de Charles R. Darwin. Des que va tornar del seu viatge transoceànic a bord del Beagle, s’instal·là a Down, a prop de Londres, i es dedicà a l’estudi de la història natural i a recollir proves que confirmessin la teoria de l’evolució.
Caricatura de Charles R. Darwin. D’una manera simplista i errònia, els detractors del darwinisme van ridiculitzar les idees de Darwin sobre els orígens de l’ésser humà.
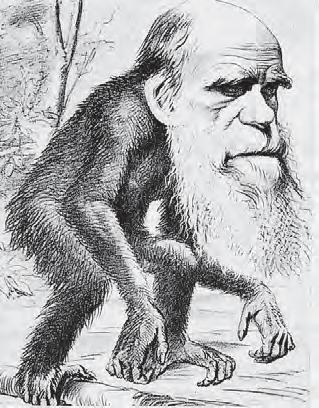
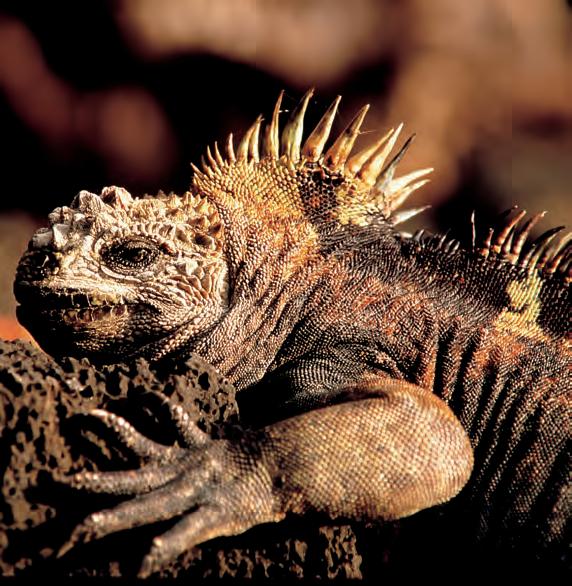
mecanisme de la selecció natural, o lluita per l’existència, com a motor de l’evolució en actuar sobre la variabilitat existent en les poblacions naturals.
En síntesi, Darwin hi argumenta els conceptes següents:
a) Les espècies tenen un enorme potencial reproductor, encara que no totes les cries –les quals no són uniformes, sinó variables–arriben a adultes.
b) Només sobreviuen les cries més aptes, perquè es produeix una selecció de la variabilitat que tria els més capaços per sobreviure.
c) En conseqüència, els organismes canvien i s’adapten al medi on viuen.
Però no tot el que va afirmar Darwin és considerat correcte avui dia. Darwin desconeixia l’origen real de la variabilitat hereditària sobre la qual actua la selecció, ja que a la seva època la genètica encara no s’havia desenvolupat; per tant, per explicar la selecció hagué d’acceptar la teoria de l’herència dels caràcters adquirits.
L’any 1871 Darwin va publicar L’origen de l’home, obra en la qual ampliava a la nostra espècie les seves idees sobre l’evolució biològica.
Itinerari del Beagle
Ens parlen de catàstrofes i sèries de diluvis
Ens surten amb sobtades i violentes revolucions del globus, amb l’elevació instantània de les serralades, amb paroxismes d’energia volcànica [...]. Ens parlen també de catàstrofes generalitzades i sèries de diluvis [...], d’una sobtada aniquilació de totes les races d’animals i plantes i d’altres hipòtesis en les quals veiem reviure l’antic esperit d’especulació i manifestar-se el desig de tallar el nus gordià, en lloc de posar-se, amb paciència, a desfer-lo.
En el nostre esforç per arranjar aquestes difícils qüestions adoptarem un mètode diferent: en tindrem prou amb les operacions conegudes de les causes existents, segurs que no hem esgotat encara els recursos que ens pot subministrar l’estudi de les actuals activitats de la naturalesa i que, en conseqüència, no tenim dret, en la infància de la nostra ciència, a recórrer a agents extraordinaris.
No ha existit mai dogma millor calculat per fomentar la indolència i esmussar el tall de la curiositat que aquest postulat de la discordança entre les primitives causes i les actualment existents. Això va produir un estat d’ànim desfavorable i, en lloc d’animar i estimular l’estudiant a emprendre laborioses indagacions d’història natural, li ensenyava a descoratjar-se des del principi. El mètode diametralment oposat a aquelles concepcions teòriques consisteix en l’esforç, laboriós i carregat de paciència, d’intentar reconciliar els indicis primitius de canvi amb les proves evidents de transformacions que ara s’estan portant a terme, limitant-se primer a les causes conegudes, per especular després al voltant d’aquelles que poguessin estar en activitat en regions inaccessibles per a nosaltres. És a dir, procurar interpretar els monuments geològics comparant els canvis dels quals són prova amb les vicissituds que, actualment, es desenvolupen o poden desenvolupar-se.
CHARLES LYELL, Principis de geologia (1833)
La selecció artificial explica la selecció natural
Cal tenir present el gran nombre de variacions petites i de diferències individuals que ocorren en les nostres produccions domèstiques i, en menys grau, en les que estan en condicions naturals, així com també en la força de la tendència hereditària. En la domesticitat pot dir-se, realment, que tot l’organisme es fa plàstic en certa mesura. Però la variabilitat que trobem gairebé universalment en les nostres produccions domèstiques no és produïda directament per l’home, tal com molt bé han fet notar Hooker i Asa Gray; l’home no pot originar varietats ni impedir la seva aparició, únicament pot conservar i acumular les que apareguin. Involuntàriament, l’home sotmet els éssers orgànics a noves i canviants condicions de vida i en resulta la variabilitat; però aquests canvis de condicions poden ocórrer, i ocorren, en la naturalesa. S’ha de tenir present també com d’infinitament complexes i rigorosament adaptades són les relacions de tots
L’escocès Charles Lyell (1797-1875), amic i col·laborador de Darwin, fou l’impulsor del principi de l’uniformitarisme o actualisme, amb el qual va aconseguir de renovar la ciència de la geologia. Per Darwin, l’actualisme de Lyell fou un gran ajut a l’hora de comprendre les raons de l’explicació natural de les transformacions que han experimentat els animals i les plantes al llarg de la història evolutiva de la Terra.
Gravat publicat a la premsa espanyola l’any 1881, en el qual s’ironitzava sobre l’evolucionisme o transformisme.
els éssers orgànics entre si i amb les seves condicions físiques de vida, i, en conseqüència, quantes infinites diversitats d’estructura seran útils a cada ésser en les canviants condicions de vida. Així doncs, ¿pot semblar improbable, després de veure com indubtablement s’han presentat variacions útils a l’home, que altres variacions, útils d’alguna manera per a cada ésser en la gran i complexa batalla de la vida, ocorrin en el transcurs de moltes generacions successives? Si això passa, ¿podem dubtar –i recordem que neixen molts més individus dels que és probable que sobrevisquin– que els individus que tinguin qualsevol avantatge, per petit que sigui, sobre altres tindran més probabilitats de sobreviure i de procrear la seva espècie? De forma contrària, podem estar segurs que qualsevol variació perjudicial, fins i tot en el seu grau més ínfim, serà rigorosament destruïda. Aquesta conservació de les variacions i diferències individualment favorables i la destrucció de les que són perjudicials l’he denominada selecció natural o supervivència dels més aptes.
HARLES DARWIN, L’origen de les espècies (1859)
1.3. El darwinisme i la polèmica evolutiva
Un cop publicats els escrits de Darwin, un bon nombre de naturalistes li donaren suport (entre ells, els britànics Thomas Huxley i Charles Lyell i l’alemany Ernst Haeckel), però també va tenir detractors, sobretot fora de l’àmbit de les ciències naturals, ja que la concepció darwiniana de la vida i de l’home topava amb les visions idealistes del món i amb les posicions religioses més conservadores.
A Espanya eren pocs, al principi, els naturalistes que s’atrevien a proclamarse evolucionistes. Entre aquests hi havia Augusto González Linares (1845-1904) i Pelegrí Casanova (1849-1919), catedràtics, respectivament, a les universitats de Santiago de Compostel·la i València. Precisament el fet que González Linares fos apartat de la seva càtedra per defensar-hi el darwinisme originà una greu polèmica universitària que desembocà en la creació, per part de molts professors represaliats per aquell motiu, de la cèlebre Institución Libre de Enseñanza(capdavantera de la pedagogia del segle XIX i del començament del XX).
A Barcelona, com en altres llocs, les societats científiques, formades en bona part per catòlics conservadors, van mantenir una posició hostil davant les
noves teories darwinianes. Només alguns professors de la universitat, juntament amb el moviment obrer i alguns petits sectors del catalanisme d’esquerres identificables amb Valentí Almirall, acceptaven i difonien la teoria de l’evolució.
És el cas del professor Odón de Buen (1863-1945), el qual va topar frontalment amb els sectors conservadors integristes, que no van parar fins que van aconseguir que fos traslladat d’universitat.
Odón de Buen (Zuera, Saragossa, 1863 - Mèxic, 1945)
Odón de Buen va ser nomenat professor encarregat de la càtedra d’Història
Natural de la Universitat de Barcelona l’any 1889 i passà a ser-ne titular l’any 1900. Preocupat molt seriosament per l’ensenyament, publicà excel·lents manuals universitaris de geologia (1890), zoologia (1890) i botànica (1891), dels quals aparegueren nombroses edicions. Aquests llibres de text, que foren declarats de mèrit pel Consell d’Instrucció Pública, oferien per primera vegada en el nostre país una síntesi acadèmica rigorosament basada en l’evolucionisme darwinià. D’acord amb la mateixa orientació doctrinal del darwinisme, considerà molt important la divulgació popular de la història natural i en aquest aspecte destaca el llibre Las Ciencias Naturales en la Escuela Moderna (1905). Amic de Francesc Ferrer i Guàrdia, i entusiasta partidari de les idees de l’esquerra republicana que defensava des del lloc de regidor de l’Ajuntament de Barcelona primer i de senador després, l’activitat d’Odón de Buen el féu topar frontalment amb l’Església catòlica i amb el poder polític constituït. L’any 1911 fou excomunicat pel bisbe de Barcelona, separat de la càtedra i sotmès, finalment, a trasllat forçós a la Universitat de Madrid (després d’haver estat, l’any 1910, el creador de la Secció de Ciències Naturals de la Universitat de Barcelona).
A partir d’aleshores, i sense renunciar a les seves idees, se centrà preferentment en la biologia marina […], dirigí nombroses campanyes oceanogràfiques […] i fou el primer director de l’Institut Espanyol d’Oceanografia. L’esclat de la Guerra Civil, l’any 1936, el sorprengué a Mallorca i fou empresonat, fins que més tard fou intercanviat pels germans de Primo de Rivera. L’any 1939 s’exilià i treballà durant algun temps al Laboratori Biològic Marí de Banyuls (al Rosselló), des d’on marxà cap a Mèxic.
JOSÉ M. LÓPEZ PIÑERO, Diccionari històric de la ciència moderna a Espanya (text adaptat)
Odón de Buen (1863-1945) fou, des de la Universitat de Barcelona, un dels principals difusors del pensament evolutiu de Darwin, la qual cosa li comportà molts problemes.
La selecció de parentiu
El concepte de selecció de parentiu complementa el de selecció natural. Fou formulat l’any 1964 per William D. Hamilton. Aquest concepte implica que tenir cura dels parents o de la seva prole, és a dir, d’aquells amb qui es comparteixen uns mateixos gens, és eficaç en termes de selecció natural. La raó és que aquesta mena de conducta afavoreix la pervivència dels gens d’aquells organismes que actuen així; i com més estret sigui el grau de parentiu que els uneix més els afavoreix (entre germans i entre pares i fills comparteixen una mitjana d’un 50% del genotip, mentre que oncles i nebots només en tenen en comú, com a mitjana, 1/4).
La selecció de parentiu pot explicar l’aparició i l’evolució de moltes conductes altruistes, francament sorprenents, entre els animals socials: una dificultat clàssica de les teories evolutives. Darwin havia escrit que l’existència de castes estèrils (les obreres, entre les abelles de la mel, per exemple) era una especial dificultat que al principi li semblava insuperable i, aleshores, fatal per a la seva teoria. Si les obreres no es reprodueixen, com és possible que la selecció natural hagi afavorit la pervivència d’uns gens que les porten a tenir cura d’una descendència que no és la seva?
Per entendre-ho, cal fixar-se en la particular manera de reproduir-se d’aquells insectes socials: l’haplodiploïdia (mascles haploides i femelles diploides). Una abella obrera que s’escarrassa per tirar endavant les seves germanes (amb les quals comparteix 3/4 dels gens) fa més per la supervivència del seu genotip que si tingués cura de la seva prole (amb qui la uniria «només» un 50% d’identitat genètica). L’obrera individual morirà sense descendència, però els seus gens perviuran.
1.4. La teoria sintètica
Després d’algunes crisis, la teoria de l’evolució visqué un gran auge amb les noves formulacions aportades en les dècades de 1930 i 1940 per tot un conjunt d’especialistes en diferents camps de la biologia, com ara el genetista Theodosius Dobzhansky (1900-1975), el zoòleg Ernst Mayr (1904-2005), el paleontòleg George G. Simpson (1902-1975) o el biòleg Julian S. Huxley (1887-1975). Aquesta refundació, corregida i augmentada, del pensament evolutiu rep el nom de teoria sintètica o neodarwinisme. Molt esquemàticament, es pot resumir així:
a) Els gens –les unitats de la informació genètica constituïdes per ADN– són els elements determinants dels caràcters sobre els quals actua l’evolució.
b) Les mutacions –canvis aleatoris de l’estructura dels gens– constitueixen l’origen de la variabilitat: en són la causa.
c) La selecció natural i els altres factors evolutius (derivació genètica, migració, flux genètic, etc.) actuen sobre la variabilitat com a conseqüència de la pressió d’adaptació que exerceix el medi sobre els organismes.
d) Les poblacions són les unitats evolutives. La seva estructura i la seva distribució fan possible l’aparició d’espècies noves: en ambients diversos, sotmesos a pressions d’adaptació diferents, la influència dels múltiples factors evolutius serà diversa i conduirà les poblacions en diferents direccions.
e) L’aïllament té, així mateix, un paper clau en l’especiació o aparició d’espècies noves. Com que en dificulta la barreja, afavoreix la diversificació de la constitució genètica de les diferents poblacions.
Aquesta visió neodarwinista es basa en un concepte biològic d’espècie com a conjunt d’individus morfològicament semblants als seus antecessors i semblants també entre ells, capaços de reproduir-se amb altres individus de la mateixa espècie i originar descendència fèrtil. Aquest concepte, aplicable només als organismes amb reproducció sexual, posa l’èmfasi en la incapacitat d’hibridació entre espècies diferents.
Les teories actuals de l’evolució tenen en compte tant els coneixements més recents procedents de la biologia molecular com les disciplines més clàssiques, com ara la paleontologia.
Aquestes teories inclouen, per exemple, plantejaments nous i no sempre coincidents, com és ara la teoria neutralista, del genetista japonès Motoo Kimura, la qual posa en dubte que bona part de la variabilitat hereditària tingui un valor adaptatiu (al contrari, hauria de ser neutra, ja que si fos adaptativa representaria un gran llast genètic
per a les poblacions), o la teoria dels equilibris puntuats, dels paleontòlegs nord-americans Stephen Jay Gould i Niles Eldredge.
Gould i Eldredge, entre molts altres, sostenen que el ritme de l’evolució no és continu. Al contrari, sembla que s’accelera en determinats moments i situacions, en què es donen canvis importants a un ritme viu.
Aquestes noves teories són aparentment contradictòries a la teoria sintètica, però problablement s’hi poden integrar si pensem en una evolució en mosaic, amb canvis de ritme evolutius que alternen períodes de temps d’estabilitat amb d’altres susceptibles de canvis més sobtats. També caldria suposar l’existència de factors d’evolució diversos, a més de la selecció natural, que continua sent el mecanisme evolutiu més estudiat i més ben entès entre totes les explicacions donades.
10.1. Actualment no s’accepta la teoria lamarckiana.
a) Per què no es té en compte?
b) Per què diem que la teoria de l’evolució de Lamarck, basada en l’herència dels caràcters adquirits, no és certa?
c) Sovint s’ha posat com a exemple de les diferències entre el pensament de Lamarck i el de Darwin l’explicació que, suposadament, donarien l’un i l’altre de per què les girafes tenen el coll tan llarg. Com seria l’explicació de Lamarck? I la de Darwin?
d) Per què entre tota la variabilitat de les poblacions naturals, només la variabilitat genètica té importància amb relació a l’evolució?
e)La resposta anterior, permet validar o invalidar Lamarck o Darwin? Raona la resposta.
10.2. Molts animals excavadors no tenen ulls o els tenen atrofiats. Primer explica aquest fet segons la teoria de Lamarck i després segons la teoria neodarwiniana. Procura distingir i matisar les respostes. Per a un animal hipogeu, és el mateix no tenir ulls que tenir-los atrofiats? En quins casos li és més avantatjosa la primera situació i en quins l’altra?
10.3. Redacta un text explicatiu de l’evolució segons el neodarwinisme en què apareguin els termes adaptació, especiació (origen de noves espècies), gen, població, selecció natural i variabilitat.
10.4. Tria entre les tres frases següents la que consideris més encertada i explica’n els motius:
a) L’evolució biològica es refereix als canvis que es donen en l’aspecte dels organismes.
b) L’evolució biològica es refereix als canvis que es donen en els organismes al llarg del temps.
Stephen Jay Gould (1941-2002), professor a la Universitat de Harvard, va ser un dels més destacats divulgadors, durant el segle xx, de les ciències de la vida i de la Terra. En la dècada de 1970 proposà, juntament amb Niles Eldredge, la teoria dels equilibris puntuats, que completava la perspectiva darwiniana.
Mendel va publicar els resultats dels seus experiments l’any 1866, però les «lleis de l’herència» no van ser redescobertes fins a l’any 1900. Avui dia, l’estudi de l’evolució és indissociable de l’estudi de la genètica, però, paradoxalment, els descobriments d’aquells primers genetistes (o «mutacionistes») semblaven oposar-se a les idees darwinianes. L’aparent oposició se superà amb l’anomenat neodarwinisme o teoria sintètica de l’evolució.
Creure en el fixisme suposava creure que les espècies biològiques eren immutables des del moment de la seva creació divina, d’acord amb el creacionisme, o interpretació religiosa de l’origen dels éssers vius.
c) L’evolució biològica es refereix a les modificacions de les característiques genètiques dels organismes al llarg del temps.
10.5. Un dels arguments del mecanisme de l’evolució per selecció natural proposat per Darwin és que, en reproduir-se, els organismes produeixen més descendents dels que sobreviuen en un indret determinat.
a) Quina és, tal com va assenyalar Darwin, la conseqüència principal d’aquest fet?
b) L’argument exposat a la resposta anterior, tindria cap significat evolutiu si les poblacions naturals no presentessin variabilitat genètica?
10.6. Què s’entén per neodarwinisme? Per què també s’anomena teoria sintètica? Hi ha alguna diferència entre les dues definicions?
10.7. A partir de les idees que s’hi expressen, justifica quin dels dos textos següents va ser escrit per Jean-Baptiste Lamarck i quin per Darwin:
«[…] Sembla que no hi ha més propòsit en la variabilitat dels éssers vius i en l’acció de la selecció natural, que en la direcció en què bufa el vent […].»
«[…] A més, si els individus dels quals parlo, moguts per la necessitat de veure-hi de lluny i de forma còmoda, s’esforcessin per mantenir-se drets i adoptessin constantment aquest hàbit de generació en generació, no hi hauria cap dubte que els seus peus adoptarien insensiblement una conformació pròpia per mantenir-se en una actitud erecta […].»
10.8. Les potes llargues i el coll llarg de la girafa són característiques que poden interpretar-se com el resultat de l’adaptació al medi on viuen per veure els predadors de molt lluny i alimentar-se de les fulles dels arbres. Explica l’evolució de les girafes a partir dels seus avantpassats tal com farien un lamarckià, un darwinista i un neodarwinista.
10.9. Llegeix el text de Georges Cuvier de la pàgina 340 i contesta a les preguntes següents:
a) En temps de Cuvier, era generalitzada la creença en el fixisme?
b) En aquella època, a quins autors partidaris del gradualisme evolutiu es podia referir Cuvier? Quines eren les teories d’aquests autors?
c) Què són els paleoteris?
d) Quins són els animals conservats en gel (amb carn i pèl) als quals es refereix Cuvier? Com interpreta Cuvier l’existència d’aquests animals conservats? Quina interpretació se’n fa actualment?
e) Quin nom rep la teoria creacionista que defensava Cuvier? Quines són les línies essencials d’aquesta teoria?
Totes les ciències biològiques proporcionen proves de l’evolució, que es classifiquen d’acord amb la ciència de la qual procedeixen. Així, tindrem proves provinents de l’anatomia comparada, l’embriologia, la paleontologia, la biogeografia, la bioquímica i la genètica molecular.
L’estudi comparatiu de l’estructura anatòmica dels diversos grups d’organismes, o anatomia comparada, és fonamental per entendre l’evolució. Per exemple, el fet que l’esquelet d’un vertebrat tetràpode tingui la mateixa estructura tant si serveix per volar (ratpenat, ocell), caminar (ós), córrer (gasela), nedar (foca, dofí) o cavar (talp) s’explica únicament si s’admet el seu origen comú i un posterior procés de diferenciació (per adaptació) a partir d’una mateixa forma inicial.
a c e b d
Comparant l’esquelet de les extremitats dels vertebrats s’aprecia que, a pesar dels tipus de vida molt diferents, els ossos que les formen són gairebé idèntics. Això ens indica, juntament amb moltes altres proves, que tots els vertebrats formen una comunitat de descendència a partir d’un avantpassat que hauria tingut unes extremitats anteriors com les de la il·lustració de sota.
Les radiografies del costat (reproduïdes a escales molt desiguals) pertanyen als membres següents:
a) mà humana;
b) extremitat anterior d’un lleó marí de Califòrnia (Zalophus californianus); c) extremitat anterior d’un ocell trompeter (Psophia crepitans); d) extremitat anterior d’un dofí (Delphinus capensis); e) extremitat anterior d’un pingüí austral reial (Aptenodytes patagonica).
Falanges dels dits
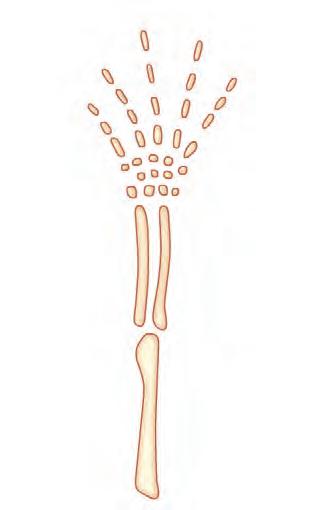
Carpians Metacarpians
Radi Cúbit
Húmer
Comparació d’embrions de vertebrats en fases diferents del seu desenvolupament. Es poden apreciar les similituds que presenten les diferents espècies, ja que els caràcters generals s’evidencien abans que els específics.
Els òrgans vestigials són també testimonis de l’evolució. A propòsit de les ales dels estruços, tan petites que no serveixen per volar, Darwin va escriure: «Hem de pensar que el progenitor dels estruços tenia costums similars als del pioc, i com que el pes i la mida del cos s’incrementaren durant generacions successives, va utilitzar cada vegada més les potes i menys les ales, fins que aquestes van arribar a ser del tot inútils per al vol».
D’una manera similar, algunes serps conserven rudimentaris ossos de la pelvis i de les extremitats posteriors, encara que inútils per a la locomoció, i les balenes amb barbes tenen dents rudimentàries que no arriben a sortir mai de les genives. Aquests casos només poden explicar-se admetent que aquests animals deriven, respectivament, d’ocells amb les ales ben desenvolupades, de llangardaixos amb quatre potes i d’antecessors de les balenes amb dents també ben desenvolupades.
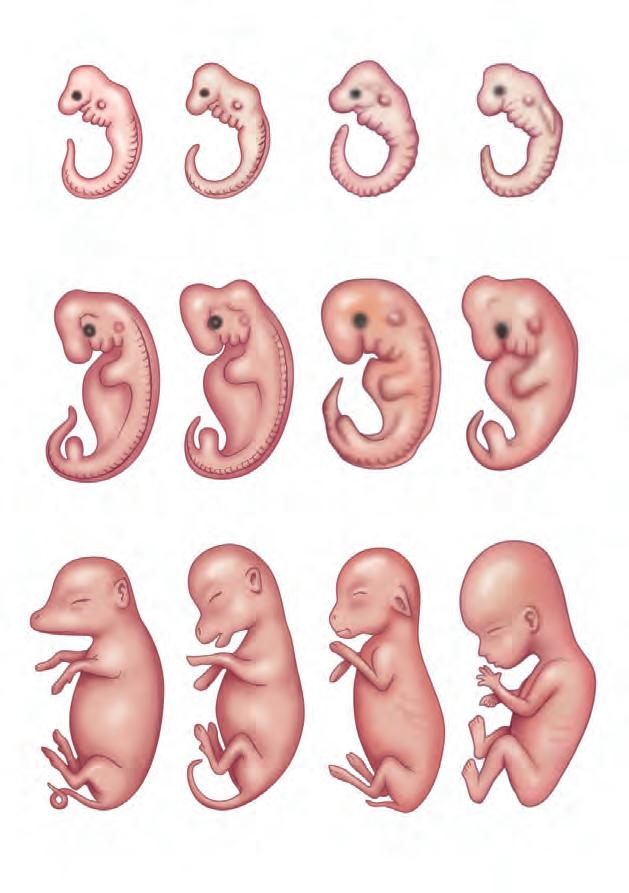
L’embriologia o estudi i comparació dels embrions dels animals mostra similituds que en els organismes adults queden ocultes. Per exemple, les fenedures branquials, que en els peixos comuniquen la faringe amb l’exterior i possibiliten un corrent d’aigua procedent de la boca, es mantenen en els capgrossos, però no pas en les granotes adultes. Els rèptils, les aus i els mamífers respiren per pulmons i no presenten aquestes fenedures en estat adult, però sí en la fase embrionària.
En un cert sentit, doncs, tots els vertebrats passen per una fase pisciforme. Més exactament, durant el desenvolupament d’un organisme, els caràcters generals apareixen abans que els específics, de manera que els primers estadis del desenvolupament d’un organisme tendeixen a assemblarse a les formes juvenils o embrionàries d’altres organismes més primitius del seu mateix grup. Això constitueix una prova de pes de l’evolució de les espècies. Aquest principi, formulat a vegades amb exageració i de maneres molt diverses, ha rebut el nom de llei biogenètica fonamental.
Homologia i analogia
Estudis d’anatomia comparada evidencien la diferència entre estructures o òrgans homòlegs i estructures o òrgans anàlegs Les primeres estructures són les que tenen la mateixa base anatòmica malgrat portar a terme funcions diferents (l’ala d’un ratpenat, la pota del cavall o el braç humà, per exemple). Els òrgans homòlegs deriven d’estructures embriològiques idèntiques, portin o no a terme la mateixa funció en l’adult. En canvi, les estructures anàlogues són les que s’usen per a propòsits similars malgrat tenir un origen diferent. En conseqüència, no poden tenir el mateix disseny arquitectònic (tot i portar a terme la mateixa funció en l’adult). L’ala de la papallona i l’ala de l’ocell en són un exemple. Els òrgans anàlegs constitueixen la resposta a una mateixa necessitat o pressió ambiental a partir d’històries embriològiques diferents.
2.3.
De l’estudi de la successió dels animals i les plantes que van viure en el transcurs de les eres geològiques procedeix una prova paleontològica capital de l’evolució: els fòssils més antics corresponen a espècies diferents i més primitives que les actuals, mentre que els fòssils més recents ho són d’espècies més properes a les actuals.
En alguns casos, encara que pocs perquè el registre fòssil és fragmentari, l’existència de fòssils és especialment rica. Això és el que succeeix, per exemple, en el cas dels cavalls i els elefants. Per a aquestes dues línies d’organismes és possible, a partir de l’estudi de les restes fòssils, reconstruir amb detall i pas a pas l’evolució de tot el grup.
2.4.
De l’estudi de les àrees de distribució dels éssers vius, és a dir, de la biogeografia, en deriven també moltes proves de l’evolució. Sense tenir en compte l’evolució, la distribució dels animals i de les plantes sobre la Terra sembla caòtica. Per exemple, com podem explicar que tots els micos de l’Amèrica Central i de l’Amèrica del Sud pertanyin al mateix grup taxonòmic (el dels platirins)
Megahippus
Archaeohippus
Hypohippus
Principals etapes de l’evolució del cavall des de l’eocè. Els canvis principals, que van ser progressius, foren els següents: – augment de la grandària corporal; – reducció del nombre de dits i enfortiment del dit mitjà; – augment de la superfície trituradora dels queixals.
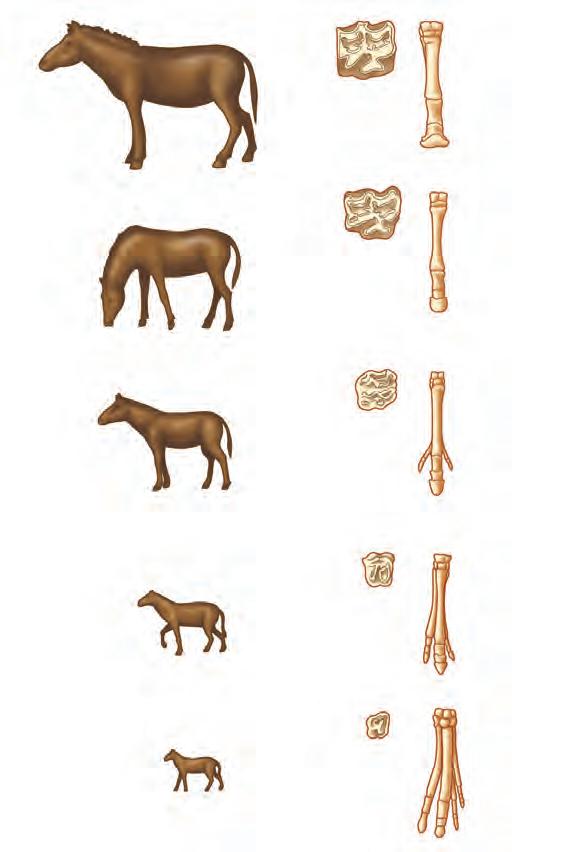
Reducció del nombre de dits
Superfície abrasiva dels molars
Pasturadors
Pliohippus
Hipparion
Merychippus
Parahippus
Miohippus
Pasturadors
Brostejadors
Mesohippus
Orohippus
Eohippus
Deriva continental i biogeografia
El coneixement de la deriva dels continents –com a conseqüència del moviment de les plaques litosfèriques– al llarg dels temps geològics permet interpretar la distribució dels organismes a la llum de l’evolució. Hi ha alguns exemples notables que, altrament, no tindrien explicació possible. Per exemple, el petit rèptil aquàtic Mesosaurus es troba en roques del permià del Brasil i també d’Àfrica
Occidental. O la falguera Glossopteris, també del permià, que s’ha trobat en roques d’Amèrica del Sud, Àfrica austral, Índia i Austràlia.
i s’assemblin més entre si que a qualsevol altre mico d’Àfrica o Àsia? La resposta només la podem donar si pensem en termes evolutius i tenint en compte els fenòmens d’aïllament (geogràfic i reproductor), de diversificació i d’especiació o formació de les espècies. Per regla general, s’observa que com més lluny estan dues regions l’una de l’altra, més diferents són les seves faunes i flores. Aquesta regularitat només pot trobar una explicació en els mecanismes evolutius (selecció, deriva, aïllament, especiació, etc.).
Arbres filogenètics: del cladisme a la biologia molecular
Un arbre filogenètic presenta informació en dues dimensions. L’eix horitzontal mostra el grau de parentiu entre els principals grups d’organismes, i l’eix vertical és una representació del temps. La informació continguda en ambdós eixos és fruit d’un gran esforç d’investigació, en la major part recent i controvertida.
[…] Avui dia els graus de parentiu s’estudien utilitzant dos tipus de tècniques. Una, la cladística, es fonamenta bàsicament en l’examen anatòmic dels organismes. […] La relació que guarden entre si s’expressa a través de diagrames en arbre, denominats també cladogrames. […] La segona de les tècniques modernes per analitzar el parentiu és l’arbre molecular o comparació de seqüències moleculars de diferents espècies. […] Com més estret és el parentiu entre dos organismes (és a dir, com més recent és el seu darrer avantpassat comú), més similars són les seves respectives seqüències d’ADN i de proteïnes. […] El cladograma i l’arbre molecular es converteixen en arbres filogenètics en afegir-hi la dimensió temporal. La informació cronològica procedeix del registre fòssil.
Arbre filogenètic obtingut a partir de les seqüències de l’ARN ribosòmic o ARNr.
Sulfolobus
Thermofilum
Cianobacteris
Bacils
E. coli
Thermomicrobium
Aquiflex (fonts termals)
Organismes de fonts termals
STEPHEN J. GOULD, El llibre de la vida (1993)
Avantpassat comú
Organismes abissals
Haloferax
Methanobacterium (rumen dels remugadors)
Methanococcus
Éssers humans
Blat de moro
Llevats
Paramecium
Dictyostelium
Euglena
Tripanosoma
Giàrdia Anaeròbics, sense mitocondris
Trichomonas
2.5. De la bioquímica i de la genètica molecular
De l’estudi de la composició química dels éssers vius i del funcionament de la seva maquinària cel·lular es deriven també moltes evidències de l’evolució. La similitud que hi ha entre l’ADN de l’ésser humà i l’ADN del ximpanzé és superior al 97%; entre l’ADN de l’ésser humà i el d’un gibó «només» hi ha una similitud del 94%, i baixa al 91% si es compara l’ADNde l’ésser humà amb el de la mona rhesus L’ADN de l’ésser humà s’assembla en un 90,5% al d’altres micos d’Àfrica, en un 84% al de la mona caputxina americana i només en un 58% al dels gàlags, un grup de primats considerats primitius. Aquestes dades confirmen l’arbre filogenètic dels primats traçat pels paleontòlegs a partir de l’estudi dels fòssils.
En conseqüència, en els darrers decennis els arbres genealògics, que abans es dibuixaven atenent només les filogènies que revelen les troballes fòssils i les similituds morfològiques existents, també poden traçar-se tenint en compte les similituds moleculars. Un clar exemple el proporciona l’hemoglobina, la molècula que tots els vertebrats utilitzen per al transport sanguini de l’oxigen, o els citocroms, molècules clau de les cadenes de transport electrònic de la respiració mitocondrial.
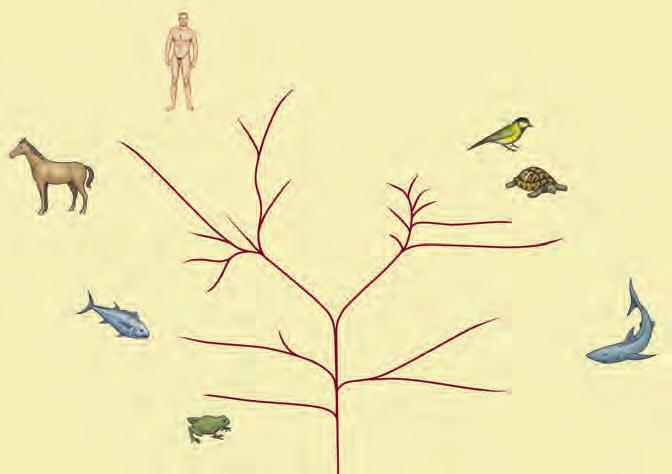
Ocells i rèptils
ossis
També altres branques de la biologia proporcionen proves de l’evolució. N’hi ha que procedeixen de la sistemàtica i de la taxonomia, de la citologia, de la fisiologia i de la genètica. Amb tot, tal vegada les proves més contundents de l’origen comú de totes les formes vivents consisteixin en la uniformitat dels processos bàsics de la vida (les 10 reaccions de la glucòlisi, per exemple, són les mateixes en totes les formes vivents) i en l’existència d’un codi genètic únic, el mateix codi que empren el bacteri, l’alga, l’arbre, la mosca, l’ésser humà, etc.
Arbre filogenètic dels vertebrats basat en les substitucions d’aminoàcids de la molècula de citocrom c. Les xifres indiquen el nombre d’aminoàcids en què cada citocrom c difereix del corresponent al punt de bifurcació més proper.
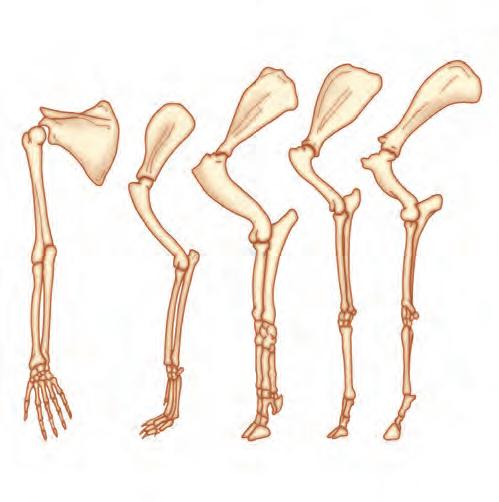
A) Omòplat
B) Húmer
C) Radi
D) Cúbit
E) Carp
F) Metacarp
1-2-3-4-5) Falanges
10.10. La il·lustració del costat representa l’esquelet de l’extremitat anterior de diversos animals. Observa-la i contesta a les preguntes següents:
a) Aquestes estructures, corresponen a cap tipus d’adaptació?
b) Per quin mecanisme es poden haver desenvolupat aquestes estructures esquelètiques?
c) Es pot afirmar que aquestes extremitats constitueixen estructures anàlogues? I homòlogues? Per què?
d) Per què són tan similars aquestes estructures? Poden considerar-se amb relació a l’evolució? En constitueixen alguna prova?
10.11. Què són les fenedures branquials? Explica quina és la prova clàssica de l’evolució amb relació a aquestes fenedures.
10.12. Explica com a mínim una prova de l’evolució que derivi de la biogeografia.
10.13. Les balenes, que no tenen potes, tenen, tanmateix, els ossos de la pelvis i els de l’extremitat posterior, encara que rudimentaris i gairebé atrofiats, tal com mostra la part a) de la il·lustració de sota.
a) Quina és l’explicació més probable d’aquest fet?
b) La part b) de la il·lustració representa un Basilosaurus, un animal de 18m de longitud que va viure als mars eocens (ara fa cinquanta milions d’anys) i que és considerat l’avantpassat de les balenes actuals. Com explicaries l’evolució dels cetacis a partir del Basilosaurus?
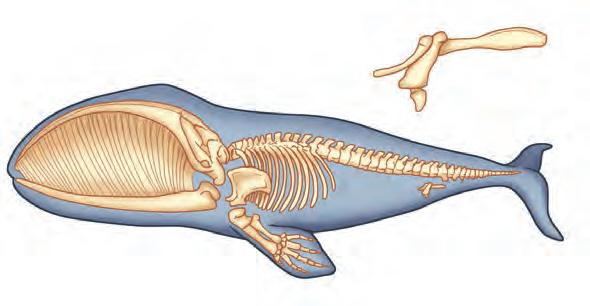
10.14. S’acostuma a dir, i és cert, que la filogènia del cavall és una de les proves més clares de l’evolució.
a)Per què són tan poc freqüents aquesta mena de proves?
b)Com eren els primitius avantpassats dels cavalls?
c)Quins caràcters principals han canviat al llarg del procés?
d)Es pot considerar que l’estructura anatòmica dels cavalls actuals és fruit de l’adaptació? Si és així, quines circumstàncies ambientals creus que han afavorit aquesta estructura?
10.15. Explica quin significat té el fet que els primats tinguin un ADN molt similar.
10.16. Has estudiat que la bioquímica i la biologia molecular aporten proves contundents a favor de la teoria de l’evolució. Observa l’arbre filogenètic basat en les substitucions d’aminoàcids de la molècula de citocrom c de la pàgina 354 i digues si es poden interpretar en aquest sentit les similituds i les diferències entre les espècies.
10.17. L’apèndix vermiforme és un tram cec de l’intestí humà. Aquest apèndix ens aporta més conseqüències desagradables que no pas beneficis, ja que les restes de menjar que s’hi acumulen poden provocar inflamacions, com ara l’apendicitis.
a)Explica, en termes evolutius, l’existència d’aquest apèndix.
b) Esmenta altres parts de l’aparell digestiu que poden interpretar-se de manera semblant.
10.18. Digues si l’existència de tants gens duplicats en els genomes complica o facilita l’explicació evolutiva d’acord amb la teoria sintètica.
10.19. Com s’explica l’aparició d’òrgans complexos o innovadors (l’ull dels vertebrats, per exemple) d’acord amb la teoria sintètica de l’evolució?
10.20. Llegeix els següents textos de Charles R. Darwin. El primer fa referència als ulls dels animals hipogeus i el segon, a les potes de les oques. Després, contesta a les preguntes que hi ha a continuació.
[…] No hi ha dubte que l’ús en els nostres animals domèstics enforteix i augmenta certes parts i el desús les disminueix, i que aquestes modificacions s’hereten […].
A l’Amèrica del Sud, un rosegador excavador, el tucotuco o Ctenomys, mostra hàbits encara més subterranis que el talp; em va assegurar un espanyol que n’havia caçat amb freqüència que molt sovint eren cecs. Un que vaig conservar viu, certament ho era. La causa, com va demostrar la dissecció, havia estat la inflamació de la membrana nictitant. Com que la inflamació freqüent dels ulls ha de ser perjudicial per a qualsevol animal i com que els ulls no són, certament, indispensables per als animals amb hàbits subterranis, una reducció de la mida dels ulls, juntament amb l’adhesió de les parpelles i la pell per sobre d’aquests, podria en aquest cas constituir un avantatge. I, si fos així, la selecció natural constantment contribuiria als efectes del desús.
[…] No és raonable creure que les potes de l’oca han arribat a ser palmades simplement a força de colpejar l’aigua.
a)Creus que hi ha elements propis del lamarckisme en el pensament de Darwin?
b)S’acostuma a dir que Darwin acceptà l’herència dels caràcters adquirits una mica a contracor, ja que desconeixia les lleis de la genètica. En qualsevol cas, quina diferència hi ha en el pensament de Darwin respecte al pensament de Lamarck sobre el paper dels caràcters adquirits?
c)Explica la ceguesa del tuco-tuco d’acord amb la teoria neodarwinista.
10.21. Observa la il·lustració de la pàgina 351 i digues en quin sentit es poden fer servir les característiques dels embrions per explicar el grau de parentiu, per evolució, de les diferents espècies de vertebrats.
10.22. Llegeix el text de Lyell que hi ha a la pàgina344 i contesta a les preguntes següents:
a)Qui era Charles Lyell? Quina importància té la seva aportació en la teoria de l’evolució?
b)Què significa l’expressió nus gordià? A què es refereix Lyell quan critica els qui volen tallar el nus gordià?
c)Quin desacord exposa Lyell amb el pensament geològic de la seva època i amb determinades maneres de fer? Exposa’n les raons tant en un cas com en l’altre.
d)¿Seria correcte dir que la idea central del text es resumeix en l’afirmació que el mètode radicalment oposat a les velles concepcions teòriques consisteix en l’esforç laboriós per trobar la concordança entre les primitives causes i les actualment existents? Raona la resposta.
e)Si haguessis d’escollir una frase del text que el resumeixi, quina escolliries?
f)Lyell afirma que, lluny d’especular, cal emprendre laborioses investigacions d’història natural i que, si no hem esgotat els recursos de l’estudi, no tenim dret a recórrer a explicacions mancades de fonament. Comenta si aquestes són característiques destacades de l’actitud i el mètode científics.
10.23. Quines foren les objeccions principals i les dificultats principals que va haver d’afrontar el pensament darwinià?
10.24. La il·lustració que hi ha en aquesta pàgina mostra el fèmur i el coxal d’un gat (a la dreta) i aquests mateixos ossos en les extremitats posteriors rudimentàries d’un tros d’esquelet d’una serp (a l’esquerra). Observa-la i fes les activitats que es plantegen a continuació:
a)Explica per què l’existència d’aquesta mena d’òrgans en diferents espècies animals constitueix una prova de la teoria de l’evolució. Raona la resposta
b)Explica si aquests ossos poden considerar-se òrgans homòlegs.
c)De quina manera es pot explicar la pèrdua de les extremitats de les serps?
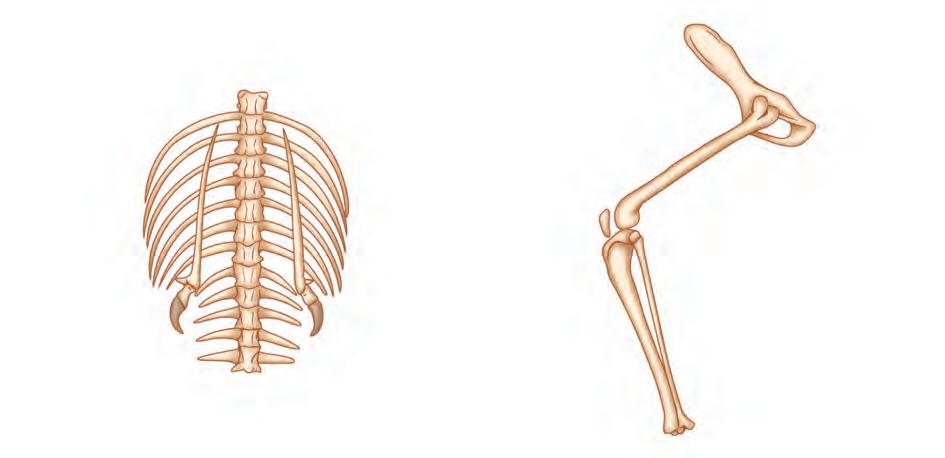
1. Llegeix aquests textos de Charles Darwin i de Lamarck:
He denominat selecció natural o supervivència del més apte la conservació de les variacions i diferències individuals favorables i la destrucció de les que són perjudicials. Les variacions que no són útils ni perjudicials no estarien afectades per la selecció natural i quedarien abandonades a un ambient fluctuant, com veiem potser en certes espècies polimorfes, o bé s’arribarien a fixar finalment, a causa de la natura de l’organisme o de les condicions de l’ambient.
Hi ha qui ha entès malament el terme «selecció natural» i qui ha posat objeccions a aquest terme. Alguns fins i tot s’han imaginat que la selecció natural produeix la variabilitat, mentre que en realitat només implica la conservació de les variacions que sorgeixen si són beneficioses […]. Ningú no s’estranya quan els agricultors parlen dels resultats poderosos de la selecció de l’home; i, en aquest cas, les diferències individuals donades per la naturalesa i que l’home tria han d’ocórrer per necessitat abans. D’altres han objectat que el terme «selecció» implica elecció conscient […].
En el sentit literal de la paraula, indubtablement selecció natural és una expressió falsa; però, qui posarà mil objeccions als químics que parlen de les afinitats electives dels diferents elements? I, en canvi, d’un àcid no es pot dir estrictament que triï una base amb la qual es combini preferentment.
S’ha dit que parlo de la selecció natural com d’una potència activa o divinitat; però, qui censura un autor que parla de l’atracció de la gravetat com si regulés els moviments dels planetes? Tots sabem què impliquen i signifiquen aquestes expressions metafòriques, que són gairebé necessàries per a la brevetat. De la mateixa manera, també és difícil evitar la personificació de la paraula «naturalesa»; per naturalesa vull dir només l’acció conjunta i el producte de moltes lleis naturals; i, per lleis, la successió de fets quan són comprovats […].
Haig d’advertir, també, que utilitzo el concepte «lluita per l’existència» en sentit general i metafòric, la qual cosa implica no tan sols la vida de l’indivi-
du, sinó –cosa que encara és més important– la seva aptitud i el seu èxit per deixar descendència.
Certament es pot afirmar que dos animals carnívors en temps d’escassesa lluiten entre si per procurar-se els elements necessaris per a la seva existència. Però s’arribarà a dir que una planta, a la vora del desert, lluita per l’existència contra la sequera, encara que seria més exacte afirmar que la seva existència depèn de la humitat.
Amb més exactitud es podrà dir que una planta que produeix anualment un milió de llavors, de les quals només una, de mitjana, arriba a desenvolupar-se i madurar, lluita amb les plantes de la seva espècie, o d’espècies diferents, que ja cobreixen el sòl […]. Uso, doncs, el terme «lluita per l’existència» en aquests sentits diferents que es confonen entre si.
La lluita per l’existència és inevitable a causa de la rapidesa amb què els éssers orgànics es multipliquen. Com que neixen més individus dels que poden sobreviure, hi ha lluita per l’existència.
CHARLES R. DARWIN, L’origen de les espècies
LESLLEISDELLAMARCKISME
1a) En qualsevol canvi que sigui una mica considerable i constant en les circumstàncies en què es troba cada raça d’animals, hi opera un canvi real de necessitats. 2a) Qualsevol canvi en les necessitats dels animals els produeix noves accions per satisfer-les i, per tant, hàbits diferents. 3a) Com que cada nova necessitat requereix noves accions per satisfer-la, exigeix de l’animal que les experimenti per mitjà de l’ús més freqüent d’alguna part que abans usava menys, la qual cosa la desenvolupa i fortifica, o de l’ús de parts noves que les necessitats creen insensiblement en aquell animal […]. I és que per arribar a conèixer les veritables causes de tantes formes diverses i de tants hàbits diferents com ens mostren els animals, és necessari considerar que les circumstàncies infinitament diversificades en les quals s’han trobat els éssers de cada raça han produït per a cadascun d’ells necessitats noves i, de manera necessària, canvis en els seus hàbits.
Reconeguda aquesta veritat, que ningú no podrà negar, serà fàcil de percebre de quina manera han pogut ser satisfetes les noves necessitats i de quina manera han estat adquirits els nous hàbits si es presta una mica d’atenció a les dues lleis de la naturalesa següents, que sempre ha comprovat l’observació:
Primera llei. En qualsevol animal que no ha arribat a la fi del seu desenvolupament, l’ús freqüent i sostingut d’un òrgan qualsevol el fortifica a poc a poc, i li dóna una potència proporcionada a la durada d’aquest ús, mentre que el no-ús constant d’un òrgan el debilita fins a fer-lo desaparèixer.
Segona llei. Tot el que la natura féu adquirir o perdre als individus per influència de les circumstàncies en les quals la seva raça s’ha trobat col·locada durant un llarg temps (i consegüentment per la influència de l’ús predominant d’un òrgan determinat, o per la del seu no-ús), la natura ho conserva en els nous individus (sempre que els canvis adquirits siguin comuns a tots dos sexes) o en els generats per aquests nous individus.
JEAN-BAPTISTEDE MONET, CAVALLERDE LAMARCK, Filosofia zoològica
a) Redacta una breu biografia tant de Darwin com de Lamarck i estableix la cronologia dels textos que has llegit. Són contemporanis? Coneixia l’un el pensament de l’altre?
b) Per Darwin, què significa selecció natural ? Per què diu que és una expressió metafòrica?
c) Lamarck, fa servir també el concepte de selecció natural?
d) Com explica l’evolució Lamarck?
e) Amb quins punts de vista de Lamarck coincideix Darwin?
f) Quins exemples usen l’un i l’altre per argumentar les seves idees? Com les explicaries tu?
g) Lamarck i Darwin, aporten algun exemple que serveixi de prova del que diuen?
h) Raona si la selecció natural és una força conscient.
2. A continuació tens alguns comentaris destacats sorgits, a finals del segle XIX, arran de la publicació de L’origen de les espècies de Darwin. Explica’n el sentit:
a) «És clar que sí! No sé com no se m’havia acudit fins ara.» (Thomas Huxley)
b) «Entre tots els naturalistes del segle XIX, Darwin ha obtingut sense cap dubte l’èxit més gran i ha exercit la influència més profunda.» (Ernst Haeckel)
c) «Descendir dels micos! Estimat, esperem que no sigui veritat, però si ho és, resem perquè la notícia no s’escampi!» (Comentari de l’esposa del bisbe de Worcester)
d) «Darwin és veritablement excepcional. Mai, fins ara, no s’havia fet un intent tan gran per demostrar el desenvolupament històric en la naturalesa, si més no amb aquesta fortuna.» (Friedrich Engels)
e) «Els temps moderns comencen l’any 1859 quan Charles Darwin publicà el seu memorable llibre L’origen de les espècies, que produí una profunda revolució en la biologia.» (Odón de Buen)
f) «El amigo o amiga, que del agua nació con alma viva, cuando le dio la gana en pez se transformó, si no fue en rana; ensanchando más tarde sus pellejos formó… varios bichejos, de estas transformaciones como fruto resultó el Director de un Instituto.
Si éste sigue la norma veremos en qué bicho se transforma.»
(Poema escrit per un professor de l’institut de Badajoz i adreçat al seu director, que era evolucionista)
g) «A Darwin (1872) […] en la copa de un árbol suspendido y con la cola asido, extraño a los halagos de la fama, sin pensar en la tierra ni en el cielo, nuestro inocente abuelo la vida se pasó de rama en rama. Tal vez enardecida y juguetona, alguna virgen mona prendióle astuta en sus amantes lazos, y más fiel que su nieta pervertida, ni le amargó la vida, ni le hirió el corazón con sus abrazos […].
¡Ay, si al romper su religioso yugo, gusta el pueblo del jugo que en esta ciencia pérfida se esconde!
¡Ay, si olvidando la celeste esfera, el hijo de la fiera sólo a su instinto natural responde!» […]
(Gaspar Núñez de Arce)
h) «Ja és antic vilipendiar la nostra espècie amb un origen tan humil com el que li assenyala el darwinisme. Però allò que és intolerable, allò que més afligeix el cor i més repugna és la greu autoritat amb què són predicats aquests deliris, fent-los passar pel fruit madur d’una civilització progressiva i d’un poble que ha adquirit la consciència de la seva dignitat.»
(Bienvenido Monzón, bisbe de Granada)
3. Observa aquestes extremitats d’alguns mamífers i contesta a les preguntes següents:
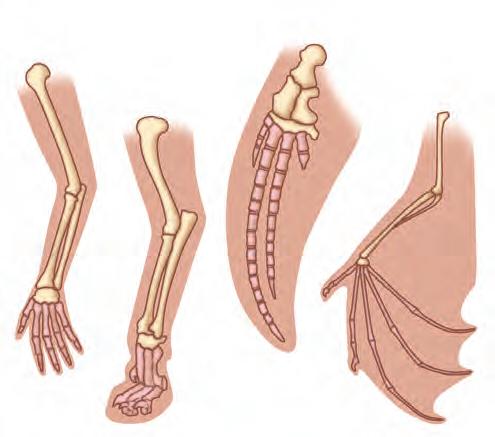
a) Com s’anomenen els òrgans o les estructures del cos que tot i exercir funcions diferents tenen una estructura i un origen comuns?
b) Malgrat ser d’estructura molt similar, els esquelets representats són diferents. Com s’expliquen, en termes evolutius, aquestes diferències?
c) Explica per què aquests esquelets constitueixen una prova de l’evolució.
4. L’eficàcia de qualsevol insecticida disminueix després d’utilitzacions repetides. Com podria explicar-se aquest fet en termes evolutius des d’una perspectiva lamarckiana, darwinista i neodarwinista?
mutació genètica de la variabilitat; selecció sexual com a factor evolutiu; importància de la meiosi en l’amplificació de la variabilitat genètica.
6. El porc formiguer de les estepes àrides de l’Àfrica meridional (a) i l’ós formiguer de la pampa sud-americana (b) són dos mamífers que pertanyen a ordres ben diferents. És a dir, són dues espècies filogenèticament allunyades. Malgrat aquest fet, però, tenen característiques molt semblants: dits amb ungles excavadores molt fortes, que usen per trencar i esbotzar els formiguers; musell llarg i cilíndric, que els permet accedir a les galeries dels formiguers, i llengua llarga i enganxosa, que usen per capturar les formigues de les quals s’alimenten. Digues, utilitzant els seus arguments, com explicarien aquest fet:
a) Lamarck.
b) Darwin.
c) L’actual teoria de l’evolució.
Digues quin nom rep el procés evolutiu gràcies al qual dues espècies evolutivament distants adquireixen òrgans o característiques anatòmiques similars, quins són els factors que l’afovereixen i com s’anomenen aquests òrgans o característiques semblants.
5. Digues si cada un dels fets següents era acceptat per part del lamarckisme i del darwinisme: generació espontània; tendència al progrés de la matèria viva; herència dels caràcters adquirits; selecció natural com a motor de l’evolució; origen per b a
1.La generació espontània no existeix
2.Teories biològiques sobre l’origen de la vida
3.Història de la Terra i de la biosfera
4.La paleontologia i els fòssils Esquema
Colònies de gavineta tridàctila.
Quan es va originar la Terra, fa uns 4600 milions d’anys, les condicions ambientals del planeta feien impossible l’existència de qualsevol forma de vida. Mil milions d’anys després, a les aigües pul·lulaven nombrosos microorganismes semblants a les cianofícies i als bacteris actuals. Fins al segle XVII, el problema de l’origen de la vida a la Terra ni es plantejava: Déu havia creat l’ésser humà i els organismes superiors, mentre que els organismes inferiors s’originaven per generació espontània. Superades aquestes simplificacions, actualment es creu que o bé la vida va arribar a la Terra des d’altres llocs de l’Univers, o, com sostenen la majoria de científics, es va originar per evolució a partir de molècules orgàniques d’origen no biològic.
Comparativament a les durades que considerem com a grans en els nostres càlculs ordinaris, foren sense cap mena de dubte necessaris un temps enorme i una variació considerable en les circumstàncies que s’han succeït perquè la Naturalesa hagi pogut portar l’organització animal fins al grau de complicació i de desenvolupament en què la veiem actualment.
Antigament, es creia en la generació espontània. Segons aquesta teoria, alguns organismes es podien originar a partir de matèria «inanimada». Equivocats per la presència d’abundants cucs i altres formes de vida en la carn en descomposició i en les matèries corrompudes, els antics acceptaren com a cosa feta i certa aquesta manera de veure les coses.
Avui en dia, no hi ha dubte que tot organisme s’origina a partir d’un o més organismes, mitjançant la reproducció, un procés característic de la vida.
Tres experiments clàssics van permetre demostrar que la generació espontània no existeix. Els van portar a terme Francesco Redi, Lazzaro Spallanzani i Louis Pasteur.
Francesco Redi (1626-1698), metge i naturalista italià, afirmava que els cucs que apareixien en la carn en descomposició no procedien de la carn mateixa, sinó que provenien de les larves formades a partir dels ous dipositats per les mosques vironeres damunt la carn. En un famós experiment, Redi va demostrar que els cucs no apareixien en un tros de carn al qual no tinguessin accés les mosques. L’experiment de Redi no va convèncer la major part dels científics de l’època. De fet, l’experiment només resolia parcialment el problema de la generació espontània, ja que no tenia en compte els microorganismes.
En el segle XVIII, el naturalista italià Lazzaro Spallanzani (17291799) va portar a terme experiments amb els quals demostrà que si un aliment susceptible de descomposició es tancava hermèticament i s’escalfava romania estèril i només hi apareixien microorganismes si entrava en contacte amb l’aire. Tot i que això demostrava la impossibilitat de la generació espontània, inclosa la dels organismes microscòpics, les seves conclusions no van ser acceptades.
Calia esperar les experiències del francès Louis Pasteur (1822-1895) perquè la comunitat científica acceptés que la generació espontània no existeix i enunciés el principi que tot ésser viu procedeix d’un altre ésser viu.
Àrea termal del camp de Leirhnjúkur (fissura de Krafla, Islàndia). Les aigües càlides (gairebé bullents) d’aquests pous i solfatares contenen una abundant diversitat d’organismes procariotes, probablement no gaire diferents dels que visqueren a la Terra durant les primeres etapes de l’evolució de la vida orgànica.
Actualment, l’estudi de l’origen de la vida és una branca de la biologia. Des de les primeres dècades del segle XX s’ha desenvolupat la teoria de l’origen de la vida a partir de molècules orgàniques d’origen no biològic, en les primeres etapes del desenvolupament del planeta.
L’evidència que tots els éssers vius comparteixen la mateixa dotació bioquímica i el mateix codi genètic fa possible afirmar que la vida es va originar una sola vegada a la Terra i que a partir del seu origen no ha tingut discontinuïtat.
L’estudi de l’origen i el desenvolupament de la vida es fa des de diverses perspectives:
a)Estudi detallat de la composició dels organismes i de la química de la vida a fi de conèixer les condicions necessàries per a l’origen dels primers éssers vius. En aquest camp la biologia molecular i l’enginyeria genètica estan aportant dades molt importants.
b)Desenvolupament de models experimentals per tal de sintetitzar les molècules característiques dels organismes: monòmers essencials, proteïnes i àcids nucleics.
c)Estudi detallat dels éssers vius actuals d’organització més simple, com ara els arqueobacteris, els bacteris i els virus.
d)Reconstrucció de les hipotètiques condicions ambientals existents a la Terra primitiva, en les quals es van desenvolupar els processos que originaren els primers organismes.
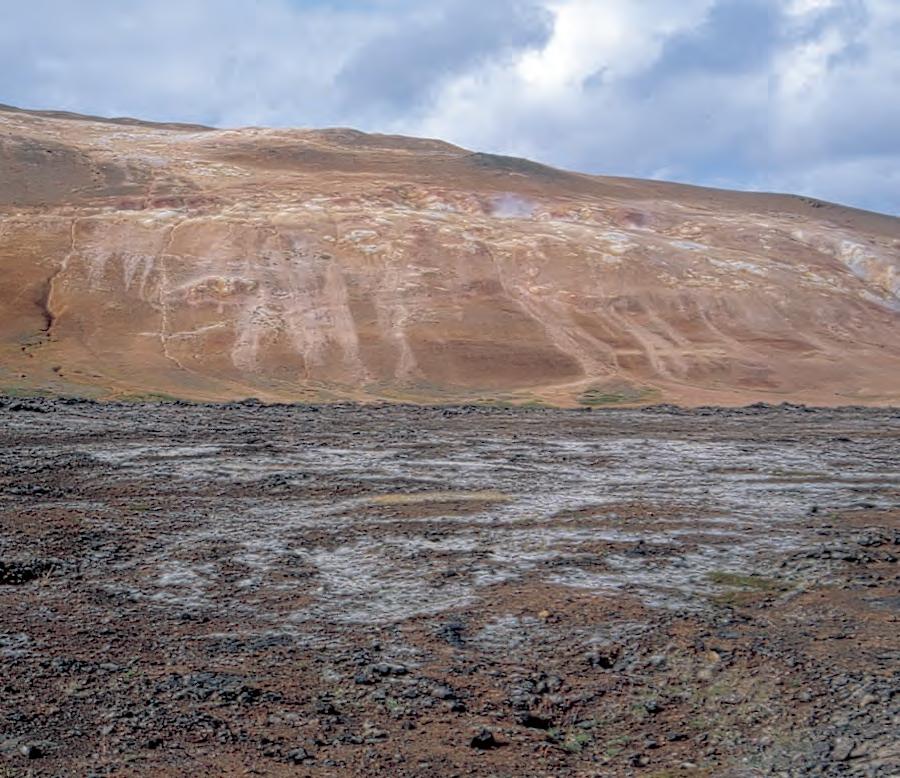
e)Estudi dels fòssils més antics coneguts, els quals, malauradament, són molt escassos.
Des del punt de vista molecular, tots els organismes contenen dos tipus de molècules bàsiques: els àcids nucleics (ADN i ARN) i les proteïnes. Els primers contenen la informació genètica, és a dir, les instruccions que possibiliten el funcionament dels organismes, mentre que les segones són una part fonamental de les estructures cel·lulars i faciliten les reaccions biològiques. Esbrinar com es van originar aquestes molècules i els seus components moleculars més senzills (els nucleòtids i els aminoàcids) és clau per entendre com es va originar la vida.
La panspèrmia
La panspèrmia és una antiga teoria segons la qual la vida a la Terra és d’origen extraterrestre. El químic suec Svante Arrhenius va ser el primer, al començament del segle XX, que va aportar arguments a favor d’aquesta teoria. Posteriorment, altres científics, com ara Francis Crick (descobridor, juntament amb James Watson, de l’estructura de l’ADN) i Fred Hoyle, han aportat arguments a favor de la panspèrmia. Segons aquests científics, la vida és el resultat d’unes circumstàncies que han de ser freqüents a l’univers i, estadísticament, cal acceptar l’existència de vida en altres cossos celestes. D’altra banda, hi ha autors que consideren com a veritables microfòssils extraterrestres algunes inclusions orgàniques trobades en diversos meteorits.
Fins i tot, des del final de la dècada de 1950, els partidaris de la panspèrmia disposen de la cèlebre equació de Frank Drake per al càlcul de N o nombre de civilitzacions actuals en una galàxia:
N = R × fp × nt × fv × fi × fc × D en què N representa aquell nombre; R, la velocitat de formació dels estels a la nostra galàxia; fp, el percentatge d’estels amb sistemes planetaris; nt, el nombre de planetes amb condicions apropiades per a la vida; fv, la fracció, dins d’aquests planetes, en què la vida es va originar realment; fi, la fracció dels planetes en què la vida va evolucionar cap a formes de vida intel·ligent; fc, la fracció dels planetes en què la vida va derivar cap a una civilització tecnològicament avançada, i D, finalment, la durada mitjana d’aquestes civilitzacions.
Per la seva banda, la majoria de científics són més aviat «cosmoescèptics» i molts pensen que, en qualsevol cas, el problema de l’establiment d’una teoria vàlida continuaria sent el mateix.
En darrer terme, acceptar que la vida s’ha pogut originar fora de la Terra no suposa sinó traslladar el problema una mica més lluny.
Les primeres teories coherents relatives a l’origen de la vida es van enunciar durant la dècada de 1920. Cal esmentar les enunciades pel bioquímic rus Alexandr I. Oparin (L’origen de la vida, 1922; L’origen de la vida sobre la Terra, 1929) i el britànic John B. S. Haldane (L’origen de la vida, 1929). Segons aquestes teories, la vida es va originar espontàniament a la Terra primitiva perquè les condicions geològiques i atmosfèriques van possibilitar la formació, en quantitat suficient, de molècules orgàniques molt variades d’importància biològica. Algunes zones dels mars arcaics eren molt riques en molècules orgàniques senzilles –es parla d’un brou primordial–, a partir de les quals es van sintetitzar les molècules biològiques fonamentals que posteriorment s’associaren i van originar els primers sistemes macromoleculars amb capacitat per créixer i autoduplicar-se.
En el seu nucli bàsic, les idees d’Oparin i Haldane han perdurat fins als nostres dies i han tingut el suport de nombroses experiències i descobriments. En l’actualitat, la teoria més acceptada sobre l’origen
La sonda Giotto, en passar a prop del cometa Halley (a 400 km del nucli), va analitzar la composició dels elements en 1500 grans de pols sòlida. Aquesta pols té una composició que varia entre dos extrems: – la pols del tipus 1, que es compon principalment de silicats; – la pols del tipus 2, que es compon principalment de molècules constituïdes pels elements C, H, O, N.
i el desenvolupament de la vida a la Terra es basa en l’evolució progressiva, en la qual es distingeixen diverses fases. Les principals etapes d’aquesta cadena química i biològica són les següents: l’evolució nuclear, l’evolució molecular, l’evolució protobiològica i l’evolució biològica
L’Univers és format d’una manera majoritària per hidrogen (92,8%), heli (7,1%) i quantitats molt petites dels altres elements. L’astrofísica sosté que els elements del sistema periòdic, i entre aquests els elements més abundants en els organismes, s’originen en els estels a partir de l’hidrogen, mitjançant reaccions termonuclears.
En l’etapa de l’evolució molecular, es distingeixen tres fases: origen de les molècules organogèniques més senzilles, origen dels monòmers biològics essencials (aminoàcids i nucleòtids) i origen de les macromolècules bàsiques dels organismes (proteïnes i àcids nucleics).
Entre les molècules organogèniques senzilles, necessàries per a la síntesi dels monòmers biològics, cal esmentar el metà (CH4), l’amoníac (NH3), el sulfur d’hidrogen (H2S), el monòxid de carboni (CO), el diòxid de carboni (CO2), el nitrogen (N2), l’àcid cianhídric (HCN), etc. No hi ha dubte sobre la presència d’aquestes molècules en els núvols interestel·lars i també se n’ha comprovat l’existència en els meteorits del tipus de les condrites carbonoses. No hi ha problemes fisicoquímics a l’hora d’explicar la presència d’aquestes molècules a la Terra primitiva. En l’actualitat, nombroses molècules organogèniques senzilles s’originen a les fonts hidrotermals de les dorsals oceàniques actives.
Nombre d’àtoms captats (valor relatiu)
Nombre d'àtoms captats (valor relatiu)
La síntesi abiòtica dels monòmers biològics essencials ha estat i és l’objecte d’una intensa investigació. Cal dir que s’han detectat diversos tipus d’aminoàcids en les fonts hidrotermals abans esmentades, i també s’han trobat molècules orgàniques complexes, com ara aminoàcids i pirimidines, en meteorits del tipus de les condrites carbonoses.
La primera síntesi abiòtica dels monòmers essencials realitzada en un laboratori, considerada plenament satisfactòria, la va portar a terme el químic nord-americà Stanley L. Miller l’any 1953. En un muntatge semblant al de la il·lustració, es van aplicar descàrregues elèctriques a una mescla gasosa de metà, amoníac, hidrogen molecular i vapor d’aigua (en aquella època es pensava que aquesta era la composició de l’atmosfera terrestre primitiva). El resultat va ser la detecció, en la fase líquida condensada, d’una gran diversitat de molècules orgàniques, entre les quals cal destacar, per la seva abundància, diversos aminoàcids que també es troben en els organismes (glicina, alanina, àcid aspàrtic i àcid glutàmic). La investigació del procés de síntesi dels aminoàcids portà Miller a la conclusió que aquests monòmers s’originen sotmetent a descàrregues elèctriques molècules orgàniques senzilles, com ara cianur d’hidrogen i els aldehids.
Seguint les mateixes condicions experimentals, més recentment s’ha aconseguit la síntesi prebiòtica de la major part dels aminoàcids que componen les proteïnes dels organismes, tret de la lisina i l’arginina. És important remarcar, de totes maneres, que l’opinió actual és que les condicions ambientals de la Terra primitiva no eren tan reductores
Elèctrodes de tungstè
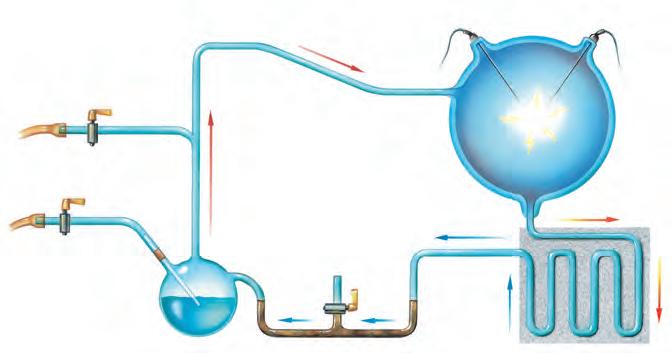
Aixeta per extreure’n mostres durant el funcionament
Condensació que conté aminoàcids
Condensador
Anàlisi dels compostos orgànics en les condrites carbonoses: les condrites contenen fins a un 3% (en massa) de carboni, oxidat (en forma de carbonat) i reduït
Diagrama esquemàtic de l’experiment de Miller.
L’any 1952 vaig demanar a Harold C. Urey1, de la Universitat de Chicago, que dirigís la meva tesi doctoral sobre la síntesi de compostos orgànics en un ambient sense oxigen i amb metà, amoníac, vapor d’aigua i hidrogen, tal com ell suggeria que era l’atmosfera inicial del planeta. Intentà fer-me canviar d’idea perquè les probabilitats d’èxit eren mínimes. […]
Acceptà a condició que si en uns mesos no obtenia cap resultat satisfactori jo canviaria el tema de la meva tesi. […]
Vam dissenyar un aparell de vidre, l’interior del qual simularia un mar amb una atmosfera, un condensador per produir pluja i un solenoide per obtenir descàrregues elèctriques: és el clàssic aparell que es reprodueix en els llibres de text. […]
El primer dia el líquid era d’un color rosat, però vaig deixar continuar l’experiment una setmana sencera. L’anàlisi cromatogràfica va revelar la presència de set aminoàcids. […] Urey em va animar a escriure’n un breu article.
STANLEY L. MILLER (2002)
1. Harold Clayton Urey va ser guardonat amb el Premi Nobel de Química l’any 1934. Així va començar tot
com les que s’han fet servir en les síntesis abiòtiques dels experiments de Miller. Experiments més recents, similars als de Miller però realitzats amb mescles de diòxid de carboni, aigua i nitrogen i sense amoníac, han donat rendiments en aminoàcids i altres molècules orgàniques molt inferiors, tant qualitativament com quantitativament.
Pel que fa a la síntesi abiòtica dels nucleòtids (els monòmers que constitueixen els àcids nucleics), tan sols s’han aconseguit resultats satisfactoris en l’obtenció de bases nitrogenades. L’any 1961, el bioquímic català Joan Oró va ser el primer a obtenir adenina a partir de cianur d’hidrogen, molècula abundant en els núvols interestel·lars i una de les molècules que s’obtenien en la síntesi de Miller. Posteriorment s’ha obtingut guanina de forma semblant, i les pirimidines s’han obtingut a partir del cianoacetilè, un dels productes dels experiments de descàrregues elèctriques sobre mescles de metà i nitrogen. Pel que fa a la ribosa, un dels components dels àcids nucleics, encara no es disposa d’un esquema raonable de com se’n va poder produir la síntesi prebiòtica i l’acumulació, ja que es tracta d’una molècula força inestable.
Donant per suposada l’existència dels monòmers essencials (els vint aminoàcids, les bases nitrogenades, la ribosa, etc.), la fase final de l’evolució molecular seria la polimerització d’aquests monòmers per donar lloc a les molècules biològiques fonamentals: les proteïnes i els àcids nucleics.
Els experiments de Fox i d’Oparin
L’any 1964 el bioquímic nord-americà Sidney Fox va observar, en abocar una mescla aquosa d’aminoàcids en roques volcàniques molt calentes, la formació d’uns agregats o «proteïnoids» (constituïts per cadenes d’aminoàcids) que presentaven certes propietats catalítiques (facilitadores de les reaccions biològiques).
Experiments similars duts a terme posteriorment per altres investigadors han aconseguit també l’obtenció de molècules tan complexes com ara els nucleòtids i, fins i tot, cadenes d’aquests.
De manera similar, el bioquímic rus Alexandr Ivanovitx Oparin va aconseguir, a partir de mescles diverses que contenien proteïnes, glúcids i àcids nucleics, la formació de coacervats, petites esferes d’entre 1 i 500 micròmetres dotades de certes capacitats per al metabolisme i el creixement.
D’Oparin són, precisament, les primeres teories coherents sobre l’origen de la vida (l’any 1922 va publicar el llibre L’origen de la vida sobre la Terra)
Subratllant que l’atmosfera originària no contenia oxigen, que és fruit, precisament, de l’activitat posterior dels éssers vius fotosintetitzadors, va fer veure que en aquelles condicions es va acumular molta matèria orgànica, que no era ni oxidada ni menjada, fins al punt que determinades zones dels mars devien formar una mena de brou primordial, a partir del qual es formarien molècules més complexes i, posteriorment, sistemes macromoleculars amb capacitat d’integració, de creixement i de multiplicació.
El funcionament de les cèl·lules actuals requereix la perfecta integració i coordinació de dos sistemes:
a) El metabolisme o conjunt de reaccions químiques que permet la conversió de materials externs en components de la cèl·lula. Aquestes reaccions són catalitzades pels enzims, que són proteïnes.
b) La transmissió d’informació genètica, que es basa en la capacitat d’autoreplicació dels àcids nucleics.
La complexa estructura tridimensional de les proteïnes, donada per l’ordenació i la disposició espacial dels aminoàcids que les formen, està codificada per l’ADN. D’altra banda, en la replicació i la transcripció de l’ADN són necessaris enzims.
Segons l’anomenat «dogma central de la biologia molecular», enunciat per Francis Crick, el flux d’informació en els organismes actuals va sempre de l’àcid nucleic a la proteïna, i mai a l’inrevés.
En els estudis sobre l’origen de la vida, un dels enigmes fonamentals és determinar si va ser primer el metabolisme o el flux de la informació. Les preguntes que es poden fer són clares: Hi hagué formes rudimentàries de metabolisme sense suport genètic, és a dir, basades en enzims no instruïts genèticament? Hi havia algun tipus de catàlisi abans de l’existència d’aquestes màquines moleculars meravelloses que són els enzims? Hi hagué algun tipus de transmissió d’informació genètica anterior als àcids nucleics?
La qüestió de si foren abans els àcids nucleics o les proteïnes ha centrat la major part dels debats sobre l’origen de la vida, i a començament de la dècada de 1980 es va descobrir l’existència de molècules d’ARN (ribozims) amb capacitat de catàlisi, fet que pot ajudar a solucionar aquest dilema. Aquestes molècules són capaces de copiarse, tallar-se en fragments i enllaçar-se de nou sense la intervenció d’enzims. Aquesta troballa ha fet suposar que el primer codi genètic era format per ARN i que, en una etapa molt primitiva de l’evolució cel·lular, molècules d’ARN haurien pogut gestionar alhora el metabolisme i el flux d’informació.
11.1. Esbrina l’etimologia del terme panspèrmia i explica breument en què consisteix aquesta teoria.
11.2. Quines molècules s’inclouen dins el grup dels anomenats monòmers essencials? Quines d’aquestes molècules s’han sintetitzat abiòticament?
El món ARN
L’ARN és el principal candidat a supermolècula primitiva. Actuant sobre si mateix a mesura que creixia, l’ARN podria haver generat una miscel·lània de possibilitats. Capaç de replicar-se i mutar, actuant com a enzim i com a gen a la vegada, l’ARN executa operacions que produeixen més còpies de si mateix. Ara podem entreveure que a la Terra arcaica va existir un ARN confinat que desenvolupà sistemes de replicació i informació a mesura que, englobat dintre de gotetes lipídiques, començava la singladura de l’autopoesi. El món de l’ADN en el qual s’emmarca tota la vida actual pot haver evolucionat dintre de cèl·lules d’ARN pertanyents al «món ARN», un terme proposat l’any 1986 per Walter Gilbert, biòleg de Harvard i premi Nobel.
LYNN MARGULIS iDORION SAGAN, Què és la vida?
11.3. Digues en quins segles van viure Francesco Redi i Lazzaro Spallanzani i quines van ser les seves aportacions científiques.
11.4. Quins van ser els primers investigadors que van elaborar teories científiques coherents sobre l’origen de la vida a la Terra?
11.5. Fes una breu descripció de l’experiment de Miller i contesta a les preguntes següents:
a) Quan es va realitzar?
b) Quines molècules es van utilitzar en l’experiment?
c) Quin tipus d’energia s’hi va fer servir?
d) Quines molècules es van originar?
e) Quines són les condicions ambientals que, segons l’experiment de Miller, hi havia a la Terra primitiva?
f) Indica quina és l’objecció principal que es pot fer actualment a l’experiment de Miller.
L’Univers, i dins d’aquest la nostra galàxia o Via Làctia i el sistema solar, no existeixen des de sempre, ni sempre han estat iguals. El mateix es pot afirmar del planeta Terra, que forma part del sistema solar.
Segons la hipòtesi més acceptada, l’Univers es va formar fa uns 14000 milions d’anys en un procés anomenat Big Bang. Així mateix, s’accepta que el sistema solar es va formar fa uns 4600 milions d’anys per condensació d’una nebulosa, és a dir, d’un núvol de gas i pols interestel·lar. La major part de la massa de la nebulosa va originar una estrella, el Sol, centre i principal cos del sistema. Les restes de la nebulosa van originar un disc perifèric que girava al voltant de la massa central. Aquest disc era format per una gran quantitat de cossos de petites dimensions que, o bé s’aglomeraven entre ells (acreció), o bé xocaven frontalment i es destruïen.
Els processos d’acreció van predominar sobre els xocs destructius i es van formar objectes cada cop més grans, els protoplanetes, fins a originar en uns cent milions d’anys els planetes del sistema solar. Els asteroides i els cometes són les restes d’aquell disc planetari que han persistit fins a l’actualitat.
Cal remarcar que tots els àtoms que constitueixen els minerals, les roques, l’aigua, l’aire i els organismes de la Terra es van formar a les estrelles mitjançant reaccions de fusió nuclear a partir de l’hidrogen, que és el principal component de l’Univers.
Els primers centenars de milions d’anys de la història de la Terra van ser molt convulsos, tant pel continu impacte d’altres cossos procedents de l’exterior, com pels esdeveniments gravitatoris i tèrmics que es produïen a l’interior del planeta. Fa uns 4600 milions d’anys ja es pot parlar del planeta Terra, malgrat que les seves mides, estructura i condicions físiques eren molt diferents de les actuals. Inicialment el planeta era format per una barreja heterogènia de metalls –el més abundant dels quals era el ferro– i silicats.
La condicions tèrmiques de la Terra primitiva eren extremes, amb temperatures superficials de centenars de graus i de milers de graus a l’interior. L’energia responsable era la calor despresa pels impactes i la procedent de la desintegració dels elements radioactius. La Terra estava en fusió i la superfície terrestre era un oceà de magma.
Un esdeveniment important en la primitiva història terrestre va ser l’anomenada «catàstrofe del ferro» o «gran esdeveniment tèrmic». El ferro, el metall més abundant a la Terra, pesant i poc refractari (es fon amb més facilitat que altres metalls), va caure per gravetat cap al centre del planeta i va desplaçar els silicats cap a les zones més superficials. La formació del nucli terrestre va originar una extraordinària quantitat d’energia gravitacional, que encara manté parcialment fos a l’interior de la Terra i que ha estat responsable de la dinàmica de les capes més externes del planeta, la tectònica de plaques.
Amb aquest procés va començar la diferenciació química del planeta en tres capes diferents, el nucli metàl·lic –parcialment fos–, el mantell de silicats –afectat per grans corrents de convecció– i l’escorça –en contínua renovació.
3.2. La formació de l’atmosfera i la hidrosfera
Una de les característiques bàsiques del planeta Terra és la presència de dos embolcalls fluids que determinen en gran manera les condicions superficials. L’atmosfera és la capa gasosa contínua que regula les característiques climàtiques generals i intervé en els processos geològics externs. En realitat, es compara l’atmosfera amb una gran màquina tèrmica moguda per l’energia solar. La hidrosfera és la capa discontínua d’aigua que cobreix el 70% de la superfície terrestre, en constant interacció amb l’atmosfera.
Molt probablement, la Terra primitiva va tenir una atmosfera primària formada pels elements més lleugers de la nebulosa solar, com l’hidrogen i l’heli. Aquests elements són en l’actualitat els components principals de l’atmosfera de Júpiter. A la Terra, a causa de la seva complexa evolució tèrmica, l’atmosfera primària es va perdre.
L’atmosfera secundària, de la qual deriva l’atmosfera actual, es va formar a partir dels gasos emesos en l’intensa activitat volcànica i plu-
L’atmosfera primitiva era anòxica, és a dir, no contenia oxigen. L’acumulació d’aquest gas, que si bé és fonamental per a la respiració degué resultar tòxic per als organismes primitius, fou una conseqüència secundària dels processos fotosintètics dels primitius cianobacteris.
Es creu que la Lluna es va formar a partir de les restes originades per l’impacte d’un protoplaneta, de la mida de Mart, damunt de la superfície terrestre en les primeres etapes de la formació del sistema solar.
Els temps geològics
La història de la Terra es divideix en dos eons o grans períodes de temps.
Primer eó, criptozoic o precambrià
Es divideix en:
– hadeà
– arqueà
– proterozoic
Segon eó o fanerozoic
Es divideix en:
– paleozoic
– mesozoic
– cenozoic
tònica que va tenir lloc en les fases inicials de l’evolució de la Terra. Aquesta atmosfera era formada per vapor d’aigua (H2O), diòxid de carboni (CO2), nitrogen (N2), metà (CH4), sulfur d’hidrogen (H2S), etc., i era anòxica, és a dir, sense oxigen.
A mesura que la superfície terrestre s’anava refredant, part del vapor d’aigua de l’atmosfera es condensava i precipitava en forma d’aigua líquida. D’aquesta manera es va formar l’oceà primitiu i va començar el cicle de l’aigua. Amb les dades actuals, es pot dir que fa 3900 anys –l’edat de les roques sedimentàries més antigues datades fins ara– una part important de la superfície del planeta era coberta d’aigua. La presència d’aigua líquida a la superfície terrestre va ser una condició per al desenvolupament dels primers éssers vius.
Un dels canvis més importants que s’han produït en l’atmosfera terrestre ha estat la concentració d’oxigen, que en l’actualitat arriba a quasi un 21%. La gran majoria d’aquest oxigen és degut a l’activitat biològica.
Els registre rocós permet deduir algunes dades sobre la composició de l’atmosfera. Per exemple, la formació de certs minerals i roques no és possible en ambients oxidants; és el cas de la uraninita. Les anomenades red beds, o formacions de ferro bandat, contenen abundants òxids de ferro indicadors d’un ambient oxidant. Aquestes formacions fèrriques tenen una antiguitat màxima d’uns 2000 milions d’anys.
La presència d’oxigen a l’atmosfera va ser una condició necessària per a la formació de l’ozó atmosfèric, de manera que l’atmosfera va començar a impedir l’arribada a la superfície terrestre de la major part de la radiació ultraviolada continguda en l’energia solar.
La història de la Terra, basada en la datació de les roques i en l’estudi dels fòssils que contenen, es divideix en dos grans períodes de temps o eons: el criptozoic, que etimològicament significa ‘temps de vida oculta’, i el fanerozoic, que significa ‘temps de vida aparent’. El primer eó, també anomenat precambrià, comprèn els temps geològics que van des de la formació del planeta, ara fa uns 4600 milions d’anys, fins fa uns 570 milions d’anys. Els temps criptozoics comprenen el 85% de la història i es divideixen en els següents: l’hadeà (unitat geocronològica que inclou els temps des de la formació del planeta fins a l’origen de les roques més antigues, ara fa uns 3900 milions d’anys); l’arqueà, que inclou els temps posteriors a l’hadeà fins ara fa uns 2500 milions d’anys, i el proterozoic (que significa ‘primer animal’), que engloba el temps que va des de fa 2500 milions d’anys fins a 570 milions d’anys enrere. Les condicions ambientals existents durant l’hadeà eren extremes i no és raonable pensar en l’existència d’organismes en aquella època tan convulsa de la història de la Terra.
Malgrat que els fòssils arqueans, sobretot els més antics, són molt escadussers i de difícil interpretació, es pot afirmar que la vida a la Terra es va iniciar al començament dels temps arqueans.
Amb relació als possibles fòssils arqueans, hi ha una forta polèmica entre els especialistes. Alguns experts sostenen que les roques més antigues conegudes presenten mostres d’activitat biològica; això no obstant, s’accepta de manera gairebé general que els fòssils arqueans més antics trobats fins ara tenen una antiguitat de 3500 milions d’anys. Aquests fòssils són estructures sedimentàries laminades, estromatòlits, originades per l’activitat metabòlica de diferents grups de procariotes anaerobis.
Els estromatòlits
Els estromatòlits són estructures sedimentàries de composició calcària, laminades i de forma variable, que es desenvolupen en aigües somes a causa de l’activitat metabòlica de cianofícies i de bacteris filamentosos. Els estromatòlits, que encara es formen en medis salins tancats i molt salabrosos, són les mostres indiscutibles de vida més antigues que s’han trobat a les roques. Van ser molt abundants en l’arqueà superior i en bona part del proterozoic.
Els temps arqueans van ser els de l’evolució bioquímica, fisiològica i estructural dels organismes procariotes (sense nucli ben diferenciat)i anaerobis.
Hi ha indicis geològics que permeten afirmar que fa uns 3000milions d’anys, ja al final dels temps arqueans, es va iniciar un progressiu augment de la concentració d’oxigen a l’atmosfera terrestre que s’ha relacionat amb l’inici del desenvolupament dels organismes fotosintetitzadors productors d’oxigen. La generalització d’aquest nou tipus metabòlic va suposar el pas de la vida anaeròbia a la vida aeròbia.
Durant els gairebé dos mil milions d’anys que va durar el proterozoic, es van produir fases molt importants en l’evolució de la biosfera, que es va preservar gràcies a la formació de la capa d’ozó.
Els organismes predominants durant bona part dels temps proterozoics van ser procariotes fotosintetitzadors aerobis. Els primers indicis fòssils de l’existència de cèl·lules eucariotes daten de fa uns 1400 milions d’anys. En aquest període és quan es formà el regne dels protoctists. Segons la hipòtesi més acceptada, l’origen d’aquest regne es va produir per l’associació o simbiosi de diferents tipus de cèl·lules procariotes.
Els primers tal·lòfits (plantes sense arrel, tija i fulles diferenciades) amb reproducció sexual es coneixen des de fa uns 800 milions d’anys, i els primers animals fòssils (invertebrats sense closca) es troben en roques de poc més de 600 milions d’anys.
Alguns estromatòlits són, probablement, unes de les restes més antigues d’éssers vius.
L’any 1947 es van descobrir a Ediacara (Austràlia) uns estranys fòssils de finals del precambrià. Després se n’han trobat de similars en altres continents (llevat d’Amèrica del Sud i de l’Antàrtida). Aquests fòssils ediacarians, amb una antiguitat d’entre 670 i 550 milions d’anys, comprenen una gran diversitat de formes animals de cos tou (26 espècies) anteriors a la fauna esquelètica, que constitueixen la primera gran diversificació dels animals pluricel·lulars. Algunes formes ediacarianes han donat lloc a grups coneguts (meduses, anèl·lids...), però d’altres es van extingir abans dels inicis dels temps fanerozoics pròpiament dits.
Prenent com a base la fauna d’Ediacara, s’ha establert el període ediacarià (o vendià), immediatament anterior al cambrià. Segons certs autors, l’ediacarià s’ha de considerar com el primer període de l’era paleozoica o dels temps fanerozoics.
Atmosfera reductora
Període abiòtic d’evolució química i d’enriquiment de l’ambient en molècules orgàniques
hadeà A B
Atmosfera oxidant
C D
Període d’evolució bioquímica fisiològica i estructural dels procariotes Període d’evolució de la ultraestructura de les cèl·lules eucariotes
Procariotes anaerobis
Les grans etapes de l’evolució de la vida a la Terra.
Cianòfits i procariotes aerobis
Període d’evolució de l’estructura i la morfologia dels éssers vius superiors
Eucariotes
Els trilobits eren artròpodes marins paleozoics, característics sobretot de la primera meitat de l’era paleozoica (cambrià, ordovicià i silurià), que tenien el cos dividit longitudinalment en tres lòbuls i que es van extingir al final del permià.
El fanerozoic és l’eó de la història geològica de la Terra, que inclou els darrers 570 milions d’anys. El terme, que com hem dit abans significa ‘temps de vida aparent’, fa referència al fet que els fòssils són abundants en les roques sedimentàries originades durant aquest eó. Es divideix en tres eres: el paleozoic (vida animal antiga), que comprèn des de fa 570 milions d’anys fins fa 245 milions d’anys; el mesozoic (vida animal intermèdia), que comprèn des de fa 245 milions d’anys fins fa 65 milions d’anys, i el cenozoic (vida animal nova), que comprèn els darrers 65 milions d’anys.
L’era paleozoica, també anomenada era dels trilobits, es divideix en sis períodes (cambrià, ordovicià, silurià, devonià, carbonífer i permià) i està delimitada per dos esdeveniments fonamentals en la història de la biosfera. Comença amb l’anomenada explosió vital del cambrià (alguns especialistes parlen d’un veritable Big Bang biològic), que comportà l’aparició de tots els grups d’invertebrats coneguts, i finalitza amb l’extinció del final del permià, considerada com la crisi biològica més important que ha patit la biosfera.
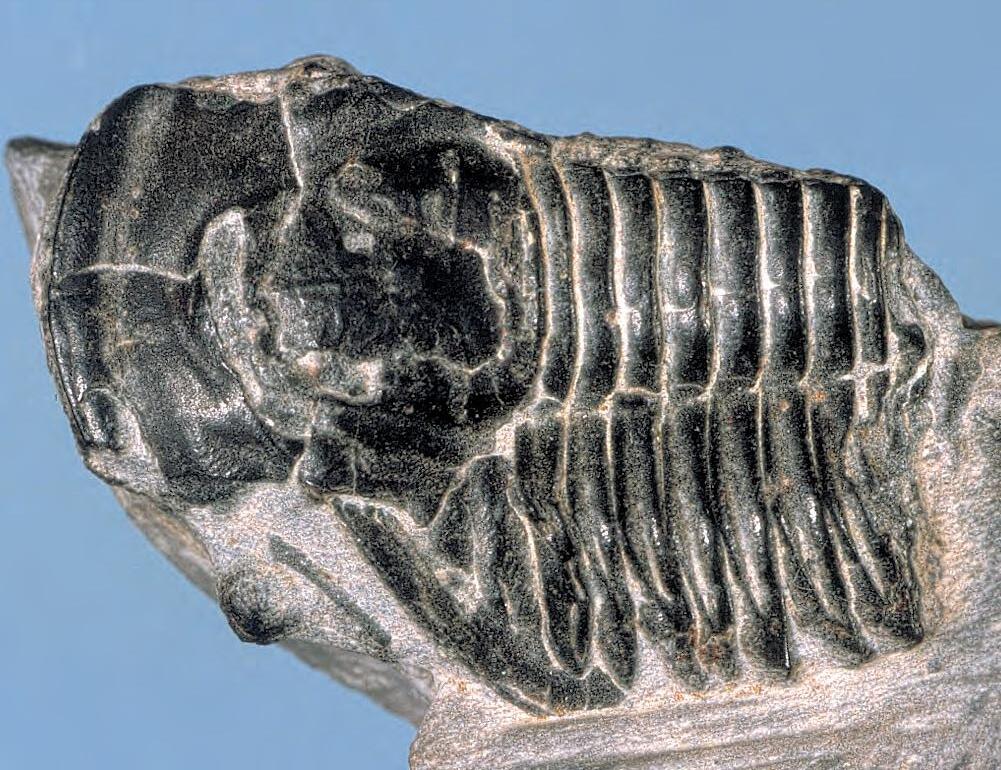
Al llarg dels temps paleozoics es van produir les fases principals de l’evolució dels vertebrats: els primers representants indiscutibles d’aquest grup es troben en roques de l’ordovicià, els primers amfibis es coneixen en el devonià superior i els primers rèptils (vertebrats plenament adaptats al medi continental) són del període carbonífer.
PERMIÀ (període darrer o més modern)
•Gran crisi biològica amb extinció de nombrosos grups: trilobits, graptòlits, mol·luscos, peixos primitius, diferents grups d’amfibis, etc.
•Les principals terres emergides estaven agrupades i formaven un gran continent: Pangea.
•Expansió i diversificació dels rèptils.
•Abundància d’amfibis de grans dimensions.
•Importants glaciacions que continuen durant el carbonífer.
CARBONÍFER
•Formació dels jaciments de carbó més importants a partir de la frondosa vegetació continental que es va desenvolupar en aquest període.
•Colonització del medi continental per diversos grups d’invertebrats i pels primers rèptils.
•Aparició dels rèptils.
•Primeres plantes gimnospermes: grans boscos de licopodis, falgueres, etc.
•Màxim desenvolupament dels amfibis, alguns dels quals eren de mides grans.
DEVONIÀ
•Important extinció en massa.
•Aparició dels amfibis.
•Diversificació dels peixos amb mandíbules i amb aletes parells.
•Inici de la colonització del medi continental per plantes i invertebrats.
•Primeres plantes del grup dels briòfits i dels pteridòfits. Primers boscos de vegetació llenyosa.
SILURIÀ
•Primeres plantes terrestres conegudes.
•Diversificació dels peixos osteïctis.
•Graptòlits molt abundants.
•Primers vertebrats amb mandíbules: acantodis.
ORDOVICIÀ
•Important extinció en massa.
•Aparició dels peixos condrictis i osteïctis.
•Abundància de coralls constructors d’esculls.
•Primers vertebrats ben datats: àgnats (sense mandíbules).
•Expansió dels trilobits i dels graptòlits.
CAMBRIÀ (període primer o més antic)
•Important extinció en massa.
•Probable primer cordat fòssil: Pikaia gracilens.
•Gran desenvolupament dels trilobits i dels arqueociats.
•Gran expansió biològica amb l’aparició i el desenvolupament dels principals fílums d’invertebrats coneguts.
1. Calceola sandalina (corall rugós del devonià). 2. Hexagonaria cf. goldsfussi (corall del devonià). 3. Orthis sinuata (braquiòpode de l’ordovicià).
4. Panenka humilis (mol·lusc bivalve de l’ordovicià). 5. Monograptus priodon (graptòlit del silurià superior).
6. Alethopteris virgiliana (pteridòfit del carbonífer). 7. Odontochile spiniferum (trilobit del devonià). 8. Sigillaria brardi (planta licopodial del carbonífer).
9. Zaphrentis canadense (corall tabulat de l’ordovicià). 10. Scyphocrinites elegans (crinoïdeu del silurià).
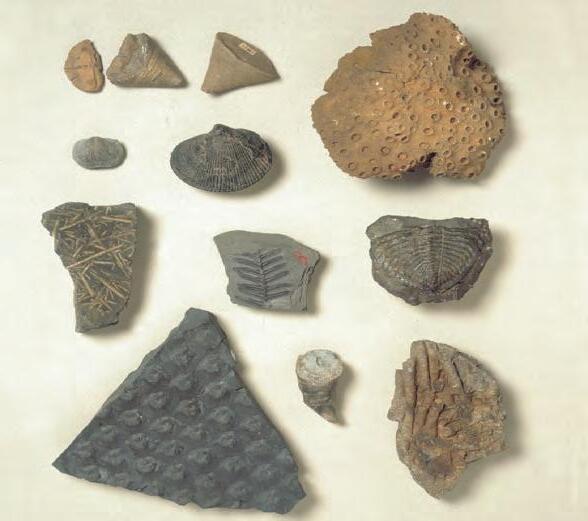
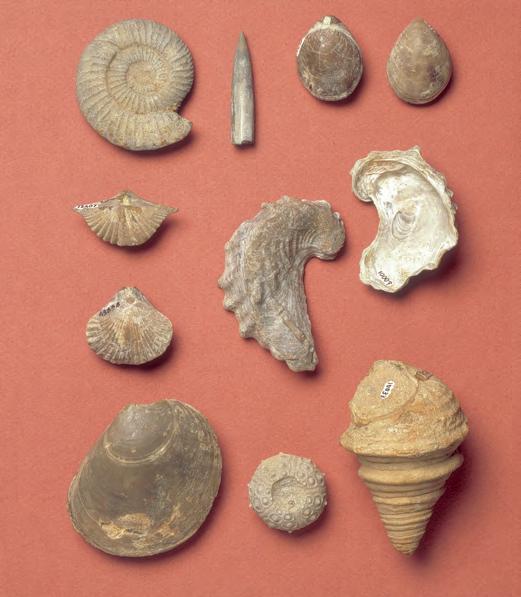
1. Perisphinctes delgadoi (mol·lusc cefalòpode del juràssic, del grup dels ammonits). 2. Belemnopsis semisulcatus (mol·lusc cefalòpode del juràssic, del grup dels belemnits). 3. Lobothyris punctata (braquiòpode de la família dels terebratúlids, del juràssic).
4. Dispiriferina oxyptera (braquiòpode del juràssic). 5. Exogira flabellata (bivalve ostreid del cretaci). 6. Lima punctata (mol·lusc bivalve del juràssic).
7. Stenocidaris ceneomanensis (equinoderm del cretaci superior).
8. Glauconia pizcuetana (mol·lusc gasteròpode del cretaci).
CRETACI (període darrer o més modern)
•Gran crisi biològica amb extinció de nombrosos grups d’organismes: ammonits, belemnits, rudistes, dinosaures, ictiosaures, pterosaures, etc.
L’extinció va ser deguda als canvis ambientals provocats per l’impacte d’un cos extraterrestre, amb grans erupcions volcàniques a Lauràsia.
•Expansió i predomini de les plantes amb flors: angiospermes.
•Belemnits, ammonits i rudistes són bons fòssils guia per datar les roques.
•Primers mamífers moderns o placentaris.
•Gran desenvolupament dels dinosaures.
•Continua la fragmentació de Lauràsia i Gondwana amb formació de les masses continentals actuals.
•Temps de bonança amb gran expansió biològica, tant en medis marins com continentals.
•Primera au fòssil coneguda: Archaeopteryx lithographica.
•Primers fòssils de peixos moderns o teleostis.
•Gran desenvolupament dels dinosaures.
•Primers fòssils d’angiospermes (plantes amb flors).
•Expansió i predomini de les plantes gimnospermes: coníferes, cicadàcies, etc.
•Inici de la fragmentació de Lauràsia i Gondwana.
•Temps de bonança climàtica i d’expansió biològica tant en medis marins com continentals.
TRIÀSIC (període primer o més antic)
•Important extinció en massa.
•Primers mamífers fòssils coneguts.
•Primers dinosaures fòssils.
•Inici de la fragmentació de Pangea amb formació dels protocontinents Lauràsia, a l’hemisferi nord, i Gondwana, a l’hemisferi sud.
•Expansió i diversificació dels rèptils.
•Progressiva recuperació de la biosfera després de la gran extinció del final del permià.
El mesozoic es divideix en tres períodes (triàsic, juràssic i cretaci) i, en general, es tracta d’un temps de gran expansió biològica, tant en els oceans com en els continents, probablement gràcies a unes condicions climàtiques, càlides i força uniformes, molt adequades per al desenvolupament dels organismes. En els medis oceànics els organismes planctònics eren molt abundants i constituïen una bona base per a les cadenes alimentàries. Pel seu interès estratigràfic cal esmentar alguns grups
d’invertebrats marins, com ara els ammonits i els belemnits, els rudistes, diversos grups de braquiòpodes i d’equinoderms, etc.
Pel que fa als vertebrats, cal destacar l’aparició dels mamífers en el triàsic, a partir de rèptils del grup dels teràpsids, i de les aus en el juràssic superior, a partir d’un grup de dinosaures.
L’era mesozoica va ser l’era dels rèptils, amb grups ben adaptats al medi terrestre (amb línies, com ara la dels dinosaures, que van evolucionar cap a formes gegants, les més grans que han existit mai), al medi aquàtic (ictiosaures) i al medi aeri (pterosaures).
Pel que fa a la flora mesozoica, cal destacar tres fets principals. En primer lloc, el gran desenvolupament que van experimentar les gimnospermes, molt abundants durant el juràssic. En segon lloc, la regressió de les pteridospermes (el grup de les falgueres). En tercer lloc, l’aparició de les angiospermes (plantes amb fruit veritable), ben representades en el registre fòssil a partir del juràssic.
Els temps mesozoics s’emmarquen entre les dues extincions en massa més importants que ha patit la biosfera, la del final del permià i la del final del cretaci, període en el qual van desaparèixer definitivament els dinosaures.
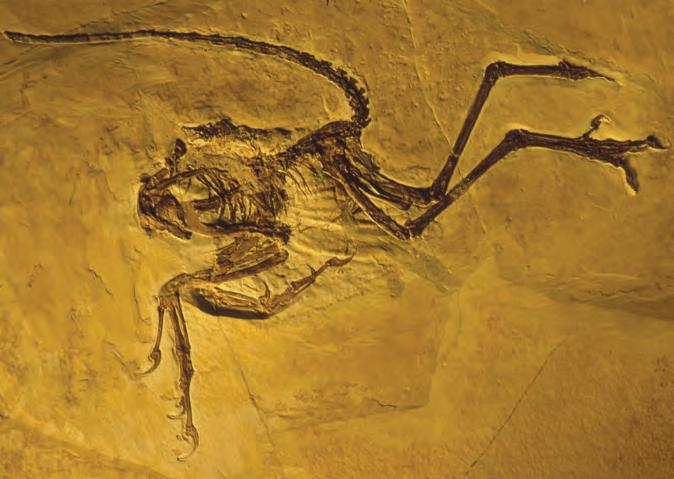
Els rudistes eren mol·luscos bivalves de conquilla irregular, amb una valva gran de forma cònica i l’altra, més petita, en forma de tapadora. Abundaren especialment en el cretaci, a la fidel qual s’extingiren.
Els ammonits eren mol·luscos cefalòpodes, de closca enrotllada en espiral, que van ser molt abundants en els temps mesozoics. Es van extingir durant la gran crisi biològica del final del cretaci.
L’Archaeopteryx lithographica és l’au fòssil més antiga coneguda fins ara.
Va ser trobada en calcàries del juràssic superior a Baviera (Alemanya). Presenta una clara barreja de caràcters reptilians amb caràcters propis de les aus.
a) El món al començament de l’era secundària.
b) El món al final del triàsic.
c) El món al final del juràssic.
d) El món al final del cretaci.
La geografia durant els temps mesozoics
Al final de l’era paleozoica, les masses continentals apareixen agrupades en un gran continent, anomenat Pangea, envoltat per un oceà, el Pantalassa. Fa uns 180 milions d’anys, al final del període triàsic, Pangea havia començat a fragmentar-se i en aquells temps ja es distingien dos conjunts continentals, l’un situat al nord, anomenat Lauràsia, que incloïa els actuals conjunts d’Amèrica del Nord i Euràsia, i l’altre situat al sud, anomenat Gondwana, que incloïa els actuals conjunts d’Amèrica del Sud, Àfrica, Austràlia, l’Índia i l’Antàrtida.
Entre ambdues masses continentals es va desenvolupar una àmplia massa oceànica que els geòlegs anomenen mar de Tetis.
Al final del període triàsic, i durant la resta del mesozoic, Gondwana i Lauràsia es van fragmentar i van originar les masses continentals actuals. Primer es van separar l’Índia i Austràlia del continent de Gondwana, i al final del juràssic, fa uns 130 milions d’anys, es va iniciar la formació de l’Atlàntic nord amb la fragmentació del continent de Lauràsia i la separació d’Amèrica del Nord i Euràsia. Al final del cretaci, fa 65 milions d’anys, tot l’Atlàntic estava en fase d’expansió o creixement, Amèrica del Sud estava separada d’Àfrica i l’Índia es desplaçava cap al nord.
O N D W A N A a c b d
LAURENTIA EURÀSIA (Angara)
LAURÀSIA PANTALASSA
MAR AUSTRAL
O N D W A N A
Els darrers 65 milions d’anys constitueixen el cenozoic,que agrupa dos sistemes: el terciari, que s’estén fins al final del pliocè, i el quaternari, que comprèn el pleistocè i l’holocè. Després de la gran crisi biològica del final del cretaci, que va provocar l’extinció de nombrosos grups d’organismes típics de l’era mesozoica, va començar el desenvolupament de les flores i les faunes modernes. Els mamífers, que durant els temps mesozoics van estar relegats a un segon pla davant els formidables rèptils, van iniciar la seva gran diversificació fins a convertir-se en el grup de vertebrats terrestres predominant. Al començament del cenozoic és quan van aparèixer els primats, l’ordre de mamífers al qual pertany l’ésser humà.
HOLOCÈ (actual)
•Temps actuals postglacials.
•Transgressió marina generalitzada.
PLISTOCÈ
• Homo sapiens.
•Grans canvis climàtics amb alternança de períodes freds (glaciacions) i períodes càlids (interglacials).
PLIOCÈ (darrer període terciari)
•Inici dels grans canvis climàtics.
• Homo erectus, Homo habilis i diverses espècies d’Australopithecus.
MIOCÈ
•Divergència entre el grup del ximpanzé i el que donarà lloc a l’Homo sapiens.
•Formació dels Alps i de l’Himàlaia.
•Climes càlids i secs.
•Expansió dels primats hominoides.
•Expansió dels mamífers amb una notable diversificació de les espècies.
OLIGOCÈ
•Tendència al refredament general del clima.
EOCÈ
•En els mars, gran abundància de mol·luscos, coralls, equinoderms, etc.
•Primers simiformes (simis o antropoides).
•Els nummulits són els fòssils més característics d’aquest període.
•Gran expansió dels mamífers amb aparició de nombrosos grups nous.
PALEOCÈ (període primer o més antic)
•Primers prosimis fòssils.
•Inici de la recuperació de la biosfera després de l’extinció del final del cretaci.
Els foraminífers constitueixen un grup de protozous marins coneguts des del cambrià i encara abundants en els mars actuals. La major part dels foraminífers són bentònics i presenten una closca mineralitzada, la qual cosa en facilita la fossilització. Els foraminífers de la il·lustració són tots del període eocè i es fan servir com a fòssils estratigràfics. L’acumulació de les closques d’aquests foraminífers dóna lloc a roques ornamentals molt apreciades, com ara la calcària nummulítica o pedra de Girona. 1. Operculina alpina. 2. Operculina canalifera. 3. Assilina placentula (forma A) 4. Assilina placentula (forma B).
5. Discocyclina aechiaci. 6. Operculina praespira. 7. Alveolina fusiformis.
8. Nummulites millecaput.
9. Nummulites biedai.
L’Archaeopteryx, l’ocell més antic conegut, va viure fa uns 150 milions d’anys a les costes tropicals d’una mar soma situada a l’actual sud d’Alemanya. Les mans i els peus, forts, estaven armats d’ungles i a la boca hi tenia dents. Al costat d’aquests caràcters reptilians, les extremitats anteriors eren ales, tot i que acabaven en dits armats d’ungles, i tot el cos ja era recobert de plomes ben formades.
11.6. Quines són actualment les restes del primitiu disc planetari a partir del qual es van formar els planetes?
11.7. S’accepta que la Terra va passar durant les primeres etapes de la seva existència per una fase de fusió. Quin va ser l’origen de l’energia necessària per realitzar aquesta fusió?
11.8. Com s’anomenen els dos eons en què es divideix la història geològica de la Terra?
11.9. Llegeix la següent llista de períodes geològics, escull els que pertanyen al paleozoic o primera era i ordena’ls cronològicament: silurià, cretaci, permià, ordovicià, carbonífer, miocè, cambrià, triàsic, devonià i eocè
11.10. Relaciona cada mot o sintagma del primer grup amb el del segon grup que li correspongui.
Primer grup:
Pliocè, aparició dels dinosaures, paleogen, mesozoic, homínids fòssils, holocè, carbonífer, primera au fòssil, paleozoic, aparició dels amfibis, precambrià, fanerozoic.
Segon grup: Archaeopteryx, devonià, quaternari, criptozoic, darrers 570 milions d’anys, neogen, faunes antigues, triàsic, edat dels rèptils, nummulits, aparició dels rèptils, australopitec.
11.11. Indica l’edat, en milions d’anys, dels següents esdeveniments de la història geològica de la Terra: a) formació de l’Univers; b) inici de l’eó fanerozoic; c) formació del sistema solar; d) formació de les roques sedimentàries més antigues; e) inici del proterozoic; f) final de l’era paleozoica; g) extinció dels dinosaures.
11.12. Justifica si van poder viure contemporàniament en una mateixa àrea geogràfica l’Archaeopteryx lithographica i els dinosaures.
11.13. Indica la durada (origen i final) de l’era paleozoica i quins esdeveniments es prenen per delimitar-la. Digues el nom de tres fòssils característics d’aquella era.
11.14. Quins continents actuals es van formar a partir del continent de Gondwana existent al final del triàsic?
11.15. Defineix els termes Pangea i Pantalassa.
De la gran quantitat d’organismes que han viscut a la Terra al llarg de tres mil milions d’anys, només una part insignificant ha deixat mostres de la seva existència. El terme fòssil deriva del llatí fossilis, que significa ‘desenterrar’. Originàriament, aquest terme es feia servir per designar qualsevol objecte d’aspecte estrany que es trobava a l’interior de la terra.
Els fòssils són restes d’organismes, o indicis de la seva activitat, que van viure en èpoques geològiques passades i que trobem englobats a les roques. La paleontologia (del grec palaios, que vol dir ‘antic’, onto, que vol dir ‘ésser’, i logos, que vol dir ‘ciència’) és la ciència que estudia els fòssils.
Els fòssils no sempre han estat interpretats de forma correcta. Malgrat que a l’antiguitat clàssica alguns savis van interpretar els fòssils de forma correcta, durant els segles posteriors van predominar les interpretacions fantàstiques i sovint supersticioses.
Aristòtil (segle IV aC) considerava que els fòssils eren «jocs de la natura», formacions minerals que imitaven la forma dels animals, és a dir, intents frustrats de creació d’animals.
Es pensava que els eriçons fòssils eren, per exemple, ous de serp; que els ammonits eren serps enroscades o banyes de moltó; que l’ambre (una reïna fòssil) era orina de linx o raigs del sol petrificats; els ossos fòssils es creia que eren restes d’animals fantàstics i d’aquesta manera van sorgir les llegendes de dracs, unicorns i ciclops. Algunes cultures han relacionat els fòssils amb la seva mitologia. Així, els indis navahos d’Amèrica del Nord creien que els troncs d’arbres fossilitzats d’Arizona eren els ossos d’un gegant que els seus avantpassats havien matat.
Sovint s’han atribuït als fòssils poders màgics o curatius i s’han fet servir com a medicines i amulets (a la Xina encara s’utilitzen ossos fòssils per obtenir medicines tradicionals).
4.1.
Els fòssils no són meres curiositats de la natura buscades pels col·leccionistes i exposades als museus. Ben al contrari, l’estudi dels fòssils té importants repercussions tant en el camp de la geologia com en el de la biologia.
En primer lloc, els fòssils serveixen per datar i correlacionar els estrats de les roques que els contenen, és a dir, per relacionar capes allunyades geogràficament. Per aquesta finalitat són especialment útils els fòssils guia o fòssils estratigràfics, que corresponen a organismes que van viure durant un temps geològic curt o que van evolucionar amb rapidesa i que tenien una distribució geogràfica àmplia. Els nummulits, per exemple, són uns bons fòssils estratigràfics de l’eocè.
Els fòssils són restes d’organismes que visqueren en temps passats i que han conservat la seva forma petrificada en els materials sedimentaris de l’escorça terrestre. El concepte de fòssil també s’estén a les empremtes de l’activitat, les pistes de reptació o lliscament, les petjades, etc. d’aquells organismes.
a) Pissarra carbonosa amb restes de falguera.
b) Insectes en un bloc d’ambre.
a
Hi ha fòssils que serveixen per reconstruir les condicions ambientals del passat geològic, quan aquests fòssils eren éssers vius. Els coralls, per exemple, viuen en condicions marines molt concretes i la seva presència a les roques permet deduir amb força precisió el medi en què aquestes roques es van originar.
En el camp de la biologia, els fòssils serveixen per conèixer com era la fauna i la flora d’altres èpoques geològiques i com han evolucionat.
L’estudi d’alguns fòssils ha permès relacionar grups zoològics i botànics extingits amb grups actuals, els representants vius dels quals són força diferents.
Finalment, cal destacar que l’estudi dels fòssils és fonamental en la recerca de materials geològics de notable valor, com ara el carbó, el petroli i el gas natural.
La fossilització és el conjunt de processos mitjançant els quals les restes d’un organisme, o les mostres de la seva activitat, són conservades a les roques. Es tracta d’un procés excepcional, ja que en la majoria dels casos el cadàver d’un organisme és destruït per la meteorització, l’acció de depredadors, la descomposició realitzada pels bacteris, etc. Les condicions que faciliten la fossilització són les següents:
– Que els organismes tinguin parts dures, com ara ossos, dents, closques, etc. (el 99% dels fòssils d’animals que es troben corresponen a òrgans esquelètics).
– Que les restes dels organismes siguin cobertes ràpidament per sediments o substàncies que n’evitin la destrucció.
Quan la matèria orgànica d’un organisme és substituïda per matèria mineral (calcita, pirita, sílice), es parla de mineralització. Els vegetals es transformen, durant la fossilització, en carbó, en un procés anomenat carbonització
En determinades ocasions, els organismes del passat (fins i tot les seves parts toves) es conserven perfectament en determinades substàncies. En aquests casos es parla de fossilitzacions excepcionals. Per exemple, els insectes i els altres animals conservats en l’ambre, una reïna fòssil segregada per algunes espècies d’arbres del grup de les coníferes (pins, etc.).
També s’han trobat perfectament conservats (momificats) alguns animals en dipòsits d’asfalt, substància que es forma per evaporació i oxidació d’antics jaciments de petroli.
Com a fossilització excepcional cal esmentar els mamuts, alguns exemplars dels quals s’han conservat perfectament congelats a les glaceres de Sibèria.
Les fossilitzacions més freqüents són els anomenats motlles, que corresponen a parts esquelètiques dels organismes. Però també es poden fossilitzar mostres de l’activitat d’organismes, com ara pistes de desplaçament, galeries excavades per animals en sediments, copròlits o excrements fòssils, ous, espores, pol·len dels vegetals, etc. En aquests casos es parla d’icnofòssils
L’especialització de la paleontologia
Com en altres branques del saber, sovint és difícil separar la paleontologia de les seves ciències afins, sobretot la biologia i la geologia.
El paleontòleg necessita amplis coneixements de geologia, ja que és a les roques on es troben els fòssils, i de biologia, perquè els fòssils són restes d’organismes que van viure en èpoques passades.
En la paleontologia existeixen nombrosos camps d’estudi que han originat diferents ciències:
– La paleobotànica estudia la història geològica dels vegetals. Una de les branques més recents i amb més interès és la palinologia, que estudia el contingut en pol·len i en espores dels sediments i de les roques sedimentàries.
– La paleozoologia estudia la història geològica dels animals.
– La micropaleontologia s’ocupa de l’estudi dels fòssils microscòpics, com ara els foraminífers, els radiolaris, les algues diatomees, les espícules d’esponges, etc.
– La paleoecologia estudia les relacions que van tenir lloc en el passat entre els organismes i el medi en què vivien.
– La paleoclimatologia intenta conèixer els climes del passat a partir de l’estudi dels fòssils, sobretot d’aquells que es consideren bons indicadors climàtics, ja que vivien en condicions molt concretes.
– La paleobiogeografia estudia la distribució geogràfica de les espècies en el passat.
– La paleontologiahumana o paleoantropologia va néixer a la segona meitat del segle XIX amb l’objectiu d’estudiar l’ésser humà fòssil i els seus avantpassats més immediats.
– La paleoicnologia estudia les empremtes deixades pels organismes antics i conservades a les roques (petjades, pistes, galeries d’excavació, copròlits o excrements, etc.).
El mamut (Mammuthus primigenius) era un elefant eurasiàtic, amb dos grossos ullals corbats que podien arribar a fer 5 m. Tenia el cos cobert de pèls llargs i una capa adiposa de 10 cm de gruix que el feia molt resistent al fred. Els darrers exemplars van viure fins fa 3000 o 4000 anys.
Fòssil de Lepocrimites quadrifasciatus.
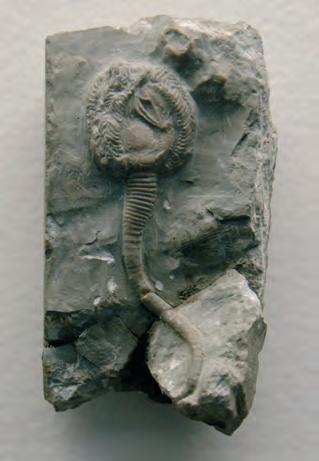
Extincions i supervivents
Les extincions massives s’han succeït a la Terra des que hi existeix vida organitzada. Podrien ser degudes a causes purament biològiques? Caldria reconèixer, d’una banda, que moltes vegades les espècies estan imperfectament adaptades al seu medi. […]
En general, les característiques fisiològiques dels supervivents potencials de les extincions són tres: una, que la dispersió geogràfica de l’espècie sigui màxima; dues, que la fase larvària, si existeix, sigui de gran mobilitat, i tres, que pertanyi a un tàxon format per moltes espècies. Tanmateix, els fòssils vivents no sempre tenen aquestes característiques. Per exemple, els cocodrils eren, com molts altres rèptils mesozoics, un grup no especialment divers. […] En realitat, no sabem per què van superar la crisi faunística del final d’aquell període, que tan durament va colpejar altres grups de rèptils.
FRANCISCO ANGUITA, Origen i història de la Terra (1988)
4.3. Les
L’extinció dels grups biològics (espècies, gèneres, famílies, etc.) és un fet normal en l’evolució de la biosfera. De fet, totes les espècies acaben per extingir-se. Les extincions són, per als evolucionistes, un procés normal de renovació i reemplaçament de les faunes i les flores, com a resultat de la selecció natural.
L’estudi detallat del registre fòssil indica que la història de la biosfera ha estat marcada per l’existència de llargs períodes de temps d’estabilitat evolutiva en els quals han predominat els mecanismes de selecció natural, amb extincions graduals o de fons de certs grups, causades per mecanismes biològics com ara la competència.
Els períodes d’estabilitat han estat interromputs per intervals breus de temps geològics durant els quals s’han produït extincions en massa que han afectat un gran nombre d’espècies. Durant aquests breus intervals, les regles del procés evolutiu es trenquen i aquestes extincions no poden ser explicades únicament per causes biològiques.
Malgrat que les extincions en massa han interromput de forma molt dràstica la diversificació de la vida en el planeta, l’ecosistema global ha sobreviscut a aquestes crisis i ha continuat expandint-se al llarg del temps. Això demostra una gran capacitat d’adaptació a les extincions gràcies als alts nivells de diversitat genètica, ecològica i de comunitats que van existir abans dels episodis d’extinció en massa.
Des de l’inici dels temps fanerozoics (que comprenen els darrers 570 milions d’anys) s’han detectat diferents extincions en massa, algunes de les quals són tan evidents que han servit per establir els límits entre eres i períodes geològics. Així, el límit entre el paleozoic i el mesozoic correspon a l’extinció més important de la història de la biosfera (la del final del permià, ara fa uns 245 milions d’anys), mentre que l’extinció del final del cretaci, ara fa uns 65 milions d’anys, marca el límit entre el mesozoic i el cenozoic.
S’han proposat dos tipus de causes per explicar les extincions en massa:
•Causes geològiques, degudes a canvis dinàmics en el planeta Terra:
–canvis climàtics ràpids i intensos; –erupcions volcàniques de gran intensitat; –episodis d’anòxia oceànica (pèrdua generalitzada d’oxigen de les aigües oceàniques); –regressions marines ràpides i generalitzades.
•Causes extraterrestres o astronòmiques: –erupcions solars gegants i supernoves properes; –canvis en la dinàmica del sistema solar; –impactes de cossos extraterrestres, com ara meteorits o cometes.
De les diverses extincions en massa que s’han pogut establir a partir de l’estudi dels fòssils, destaquen l’extinció del final del cambrià, la del final de l’ordovicià, la del final del devonià, la del final del permià i la del final del cretaci.
L’extinció del final del permià (límit entre els temps paleozoics i mesozoics) va ser, sens dubte, la crisi biològica més important que ha patit la biosfera. Es van extingir al voltant del 50% de les famílies marines existents i el 70% dels gèneres. L’extinció va ser menor en els ecosistemes terrestres. Per explicar aquesta extinció, s’han proposat diverses causes, com ara un gran vulcanisme piroclàstic, una regressió marina generalitzada, etc.
La crisi biològica del final del cretaci és la més coneguda a escala popular, ja que és quan van desaparèixer els dinosaures. En un curt període de temps geològic es van extingir aproximadament el 75 % de les espècies. Els organismes marins més afectats per aquesta extinció van ser els de closca o esquelet calcaris, mentre que els de closca o esquelet silícics pràcticament no van resultar-ne afectats. Van desaparèixer diferents grups de mol·luscos que eren molt abundants durant el mesozoic, com ara els ammonits, els belemnits, etc., i el plàncton va patir una gran regressió. Als continents, l’extinció va afectar diversos grups de vertebrats, especialment els rèptils, entre ells, els dinosaures, que van desaparèixer després de més de 150 milions d’anys d’evolució.
Per explicar l’extinció del final del cretaci, s’han proposat diverses causes. A partir de la dècada de 1970, la hipòtesi que ha suscitat més discussions científiques és la que proposa com a causa principal d’aquesta extinció l’impacte damunt la superfície terrestre d’un gran cos extraterrestre que va provocar importants canvis ambientals i una extraordinària catàstrofe ecològica. Malgrat que existeixen proves geològiques irrefutables que al final del cretaci es va produir un gran impacte damunt la Terra, alguns científics sostenen que aquest impacte no pot ser l’única causa d’aquesta extinció en massa. Per això, per explicar l’extinció del final del cretaci, aquests científics proposen causes complementàries a l’impacte d’un cos extraterrestre, com ara la gran activitat volcànica que es va produir al final del mesozoic i una baixada generalitzada de les temperatures després d’un període molt llarg de gran estabilitat climàtica amb temperatures elevades.
4.4. L’anomenada sisena extinció
Quina és la situació actual de la biosfera terrestre pel que fa a les extincions? Per a nombrosos investigadors del camp de les ciències de la vida la resposta és clara: el ritme temporal de desaparició d’espècies
L’augment exponencial de la població humana actual és el principal mecanisme que opera en favor de la «sisena extinció».
Increment de la població
dels ecosistemes terrestres indica que des de fa uns quants milers d’anys la situació actual de la biosfera terrestre pel que fa a les extincions correspon a un període d’extinció en massa. L’acció de l’ésser humà és el principal agent d’aquesta extinció.
Tres fases o etapes es poden distingir en l’actual extinció. La primera fase va començar fa entre 9000 i 15000 anys, quan van aparèixer sofisticades armes de caça i el foc es va fer servir de forma sistemàtica per dirigir ramats, especialment de grans mamífers. Les matances de grans mamífers estan comprovades en diferents continents. La següent fase de l’extinció i del deteriorament ambiental es va iniciar amb l’expansió de la revolució agrícola, especialment durant els darrers 2000 anys i molt especialment durant els darrers 500 anys. Els resultats d’aquesta fase han estat la destrucció de grans àrees d’hàbitats naturals i la seva substitució per pastures i zones de conreus. Aquesta fase continua avui dia a un ritme accelerat, atesa la necessitat d’alimentar una població humana en continu creixement. Recentment, en aquest procés de deteriorament s’hi ha afegit l’enverinament d’un gran nombre d’espècies mitjançant l’ús d’insecticides, pesticides, hormones de creixement, etc. La introducció d’espècies modificades genèticament tindrà, sens dubte, un fort impacte en les espècies no modificades.
La tercera fase de l’actual extinció correspon a la Revolució Industrial, caracteritzada per una destrucció d’hàbitats a causa de la necessitat d’explotar recursos naturals barats i no renovables. Aquesta fase inclou processos com ara la contaminació química de l’aire, de l’aigua i dels sòls d’àmplies zones del planeta, l’escalfament global del clima terrestre i l’afebliment de la capa d’ozó.
De totes maneres, el mecanisme condicionant més important, i històricament més recent, de l’actual extinció en massa és la superpoblació de la Terra per part d’una espècie, l’ésser humà, molt agressiva envers el medi natural.
11.16. Què són els icnofòssils? Quina és la ciència que els estudia?
11.17. Què estudia la palinologia?
11.18. Què és la fossilització i per quines condicions és afavorida?
11.19. Quines condicions han de tenir els fòssils per ser considerats bons fòssils estratigràfics? Quins són els fòssils estratigràfics de l’eocè?
11.20. Enumera quines són les principals causes geològiques que intenten explicar les extincions en massa que ha patit la Terra al llarg dels temps fanerozoics.
11.21. Digues si les frases que hi ha a continuació són certes o falses:
a)L’extinció en massa més important que ha afectat la Terra es va produir al final del juràssic.
b)Els mamífers fòssils més antics es troben en roques del triàsic.
c)El pliocè és la primera època del quaternari.
d)Els dinosaures van aparèixer en el triàsic.
e)En l’era mesozoica es va produir el màxim desenvolupament dels mamífers.
f)Els belemnits són fòssils exclusius de les roques originades en el mesozoic.
g)Els dinosaures són els mamífers més grossos que han poblat mai la Terra.
h)Els amfibis es van extingir al final del permià.
i)El cenozoic inclou els darrers 65 milions d’anys de la història geològica de la Terra.
j)Les aus fòssils més antigues conegudes es troben en roques del juràssic superior.
11.22. En els mapes de la pàgina 377 es representa l’evolució paleogeogràfica durant l’era mesozoica. Enumera els principals canvis experimentats per la superfície terrestre des de l’inici del mesozoic i explica les principals fases de la fragmentació de Pangea (protocontinent existent al final del paleozoic) i la formació dels principals oceans i continents actuals.
11.23. El registre fòssil, és incomplet? Quines interpretacions d’aquesta qüestió coneixes? Explica, en cada cas, quins arguments a favor i en contra hi ha per pensar d’una manera i altra.
11.24. Determinats indicis fan suposar que la teoria de la generació espontània és acceptada encara per força gent. Es tracta de comprovar-ho per mitjà d’una enquesta en què es pregunti el següent: «La teoria de la generació espontània, està desfasada?» Els passos que cal seguir són els següents:
a)Conèixer realment el significat d’aquesta teoria (què vol dir?, què suposa?, en què es basa?, quins fets reals interpreta malament?, etc.).
b)Planificar les preguntes. És evident que no es poden plantejar preguntes com ara «Creu en la teoria de la generació espontània?», sinó qüestions i fets concrets.
c)Determinar l’abast del grup que es vol enquestar (els companys i les companyes d’escola d’un determinat nivell, el pare i la mare, una mostra aleatòria de gent del carrer).
d)Passar l’enquesta.
e)Tabular els resultats.
f)Analitzar els resultats i extreure’n les conclusions.
g)Fer un informe de tot el procés.
1. Les il·lustracions d’aquesta pàgina representen alguns dels fòssils més típics. A partir dels exemplars de fòssils del laboratori del teu centre i de la biblio-
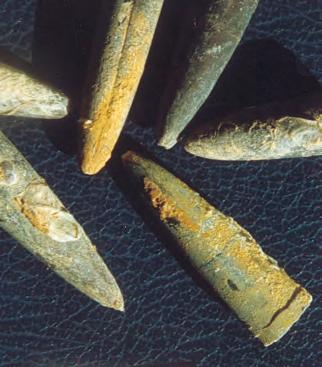
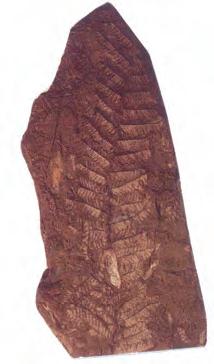
grafia de la qual disposis, indica el grup biològic al qual pertany cada fòssil, l’edat i l’ambient en què vivia.
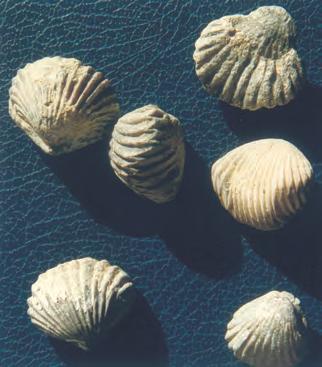
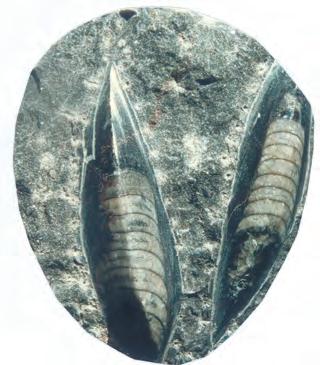
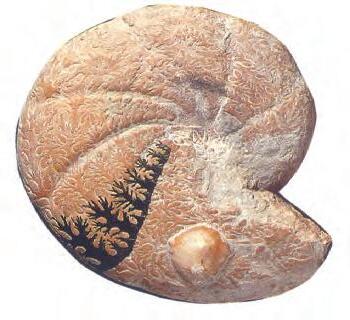
2. S’anomenen tapissos microbians les comunitats microbianes estratificades que ocupen les ribes salades d’alguns medis aquàtics poc alterats, on formen una mena de catifa o moqueta de colors adherida al fang o a la sorra de la ribera.
Els tapissos microbians es conten entre els ecosistemes més primitius que hi ha (probablement són molt similars als ecosistemes que poblaven la Terra fa 3000 milions d’anys), de manera que el seu estudi té un gran interès de cara a conèixer les condicions en què s’originà la vida sobre la Terra, a banda de l’interès per descobrir-hi microbis amb metabolismes particulars. En els darrers anys han estat molt estudiats els tapissos microbians del delta de l’Ebre, rics en el cianobacteri Microcoleus
Malgrat el seu aspecte, aparentment simple, els tapissos microbians actuals són constituïts per comunitats complexes on –en un gruix de pocs mil·límetres– desenes d’espècies interaccionen entre si. Els cianobacteris i les diatomees –i altres eucariotes fotosintetitzadors com els dinoflagel·lats– hi ocupen una posició superficial; les posicions intermèdies i inferiors són per als bacteris verds i vermells del sofre, també fotosintetitzadors però no productors d’oxigen, i per als bacteris quimiosintètics i fermentadors, com ara els reductors de sulfats, de color negrós, immersos en altes concentracions de sulfurs.
Observa les il·lustracions i contesta a les preguntes que hi ha a la pàgina següent.
Tapís microbià del delta de l’Ebre (a la columna de l’esquerra) i esquema d’un tapís microbià (a sota).
A) Diatomees (algues microscòpiques).
B) Spirulina (cianobacteri).
C) Oscillatoria (cianobacteri).
D) Microcoleus (cianobacteri).
E) Bacteris no fotosintètics.
F) Cianobacteris unicel·lulars barrejats.
G) Bacteris reductors del sulfat.
H) Bacteris oxidants del sofre.
a) Quina és la principal diferència entre les comunitats d’aquests tapissos i les dels que poblaren la Terra fa 3000 milions d’anys?
b) Una característica de tots els tapissos microbians és, tal com mostra el dibuix, la zonació horitzontal, que és el resultat dels gradients fisicoquímics entre la superfície del tapís i el substrat. Quins poden ser aquests gradients? Què els origina?
c) Per què actualment els tapissos bacterians es donen sempre en fonts termals i en ambients salats o àrids?
d) Es considera que els tapissos microbians constitueixen ecosistemes molt similars als estromatòlits. Què són els estromatòlits?
e) Un tapís microbià té una estructura laminada amb bandes horitzontals de diferents colors: verd,
marró, vermell i ocre, que corresponen als pigments fotosintètics dels organismes que ocupen cada pis. Suggereix alguna raó que expliqui aquesta seqüència de colors.
f) Quins avantatges pot representar per als diferents organismes que integren el tapís microbià el fet de viure-hi en comunitat?
g) Alguns microorganismes del tapís microbià no es troben mai a prop de les capes superficials amb oxigen, sinó que habiten una mica més avall, on no hi ha aquest gas. Quin en pot ser el motiu?
3. La il·lustració de sota representa el procés de fossilització des de la mort d’un organisme fins al descobriment de les seves restes fòssils. Explica les diferents fases que hi són representades.
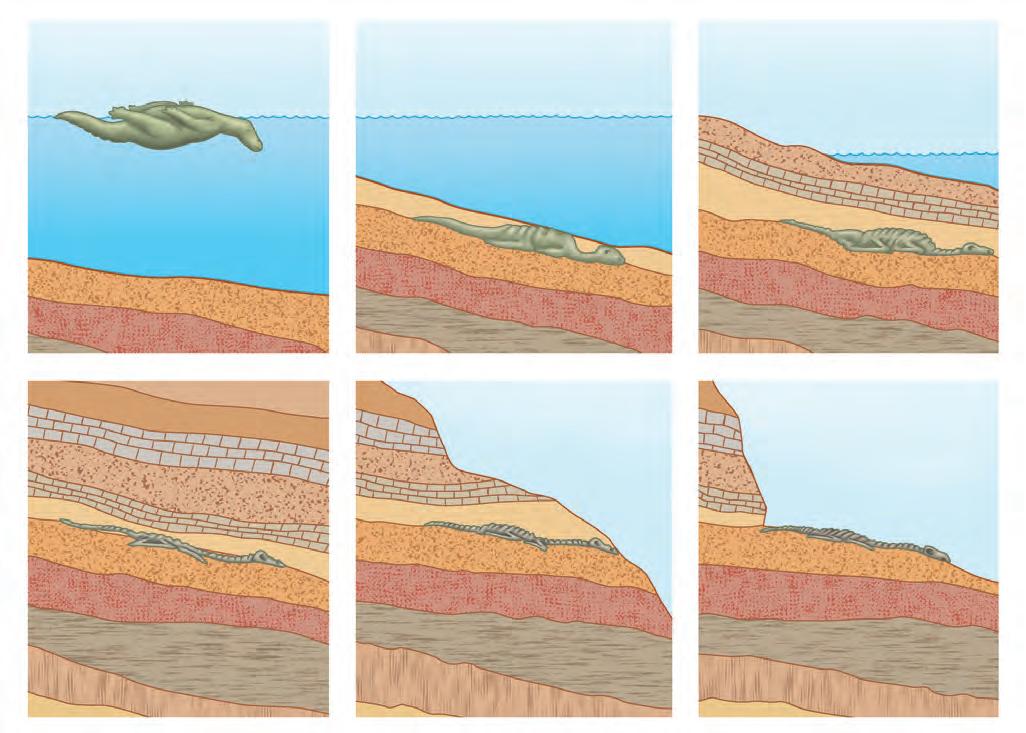
Objectius
a) Comprovació experimentalment de la veracitat o falsedat de la generació espontània.
b) Contrast de les conseqüències de l’asèpsia i l’esterilització.
c) Reconstrucció dels experiments històrics sobre l’autèntic origen dels gèrmens i de la putrefacció.
Material
– Tubs d’assaig i vasos de precipitats.
– Microscopi, portaobjectes i cobreobjectes.
– Estris necessaris per al bany maria.
– Trossets de carn.
– Fulles vegetals.
– Cristal·litzador o qualsevol altre recipient de boca ampla.
– Cotó fluix.
– Tub de vidre.
– Olla de pressió o autoclau.
Antigament es creia en la generació espontània; per exemple, es creia que els cucs que apareixen en les matèries en putrefacció (com ara la carn quan es corromp) s’hi originaven espontàniament.
Francesco Redi (1626-1698) no s’ho creia; al contrari, sospitava que les larves de les mosques vironeres n’eren les causants. Per provar-ho, va idear aquest experiment (que convé realitzar o bé a la primavera o bé a l’estiu):
1)Posa en dos tubs d’assaig uns trossets de carn; embolica’n un amb un tros de roba que ajusti bé i deixa l’altre destapat.
2)A continuació, posa’ls tots dos a l’aire lliure. Durant un parell de setmanes observa què passa. Hi ha cucs? D’on procedeixen? Per què fan mala olor? Anota les teves observacions.
Redi només va solucionar el problema parcialment, perquè no va considerar els organismes microscòpics. Lazzaro Spallanzani (1729-1799) va anar més enllà.
1)Per repetir els experiments de Spallanzani, cal preparar una infusió de fulles: posa’n un grapat en un recipient de boca ampla amb
aigua mineral i deixa el recipient a l’ombra a una temperatura moderada. Uns quants dies després, agafa’n una gota i examina-la al microscopi. La infusió és plena de vida. Dibuixa els organismes que s’hi veuen i pren nota del que hi observes.
2)Ara, posa una mica d’infusió en dos tubs d’assaig, l’un ben tapat amb cotó fluix i l’altre destapat, i bull-los al bany maria durant 15 o 20 minuts. En acabat, agafa una gota del tub destapat i examina-la al microscopi. Hi ha vida? S’hi observa moviment?
3)Deixa els dos tubs en un lloc fresc i ventilat, i observa’ls cada dia o cada dos dies durant dues o tres setmanes. Quin aspecte tenen? Quines variacions s’hi produeixen? Fan mala olor? Tots dos? D’on procedeix l’olor? Hi ha diferència entre un tub i l’altre? Anota les teves observacions.
4)Quina utilitat té el tub tapat? Quines conclusions trauries sense el tub tapat?
5)Finalment, una vegada destapat el tub cobert, observa el contingut dels dos tubs al microscopi. Hi aprecies vida, en tots dos tubs? Treu les conclusions pertinents i redacta un informe.
Molts contemporanis de Spallanzani no van acceptar el valor dels seus experiments, ja que argüien que la calor havia alterat la «força vital». Louis Pasteur (1822-1895) va idear un experiment que demostrava que fins i tot en contacte amb l’aire un medi esterilitzat no s’altera si els microbis no hi poden accedir.
Pasteur va tapar uns quants recipients de cultiu amb un tub de vidre en forma de S, que fa possible el contacte directe de l’aire interior amb l’exterior, però que no pot ser travessat totalment pels microbis perquè són més pesants que l’aire, de manera que queden dipositats a la part baixa de la S.
Una forma còmoda de repetir l’experiment de Pasteur consisteix a preparar cinc tubs com els de la il·lustració de la pàgina anterior, que continguin tots una mica d’infusió de fulles –preparada com en l’experiment anterior– i esterilitzar-los a l’autoclau o a l’olla de pressió, excepte el tub 1, que no s’ha d’esterilitzar.
1)Un cop esterilitzats els quatre tubs, posa’ls, conjuntament amb el tub 1, en un lloc ventilat i fresc i observa’ls cada dia o cada dos dies durant dues o tres setmanes. En canvia l’aspecte? Fan mala olor? Quins canvis s’hi observen? Recull els resultats en una taula que tingui una columna per cada tub. Anota-hi les teves observacions.
2)Finalment, passades dues o tres setmanes, extreu les conclusions finals:
– On hi ha vida i on no n’hi ha?
– D’on procedeixen els microbis?
– En quins tubs no hi ha hagut canvis? Per què?
– Què demostren els experiments de Pasteur que no van demostrar els de Spallanzani? En quins tubs s’aprecia això?
3)Per acabar, observa al microscopi el contingut dels cinc tubs i, una vegada destapats, comprova si es confirmen les teves hipòtesis.
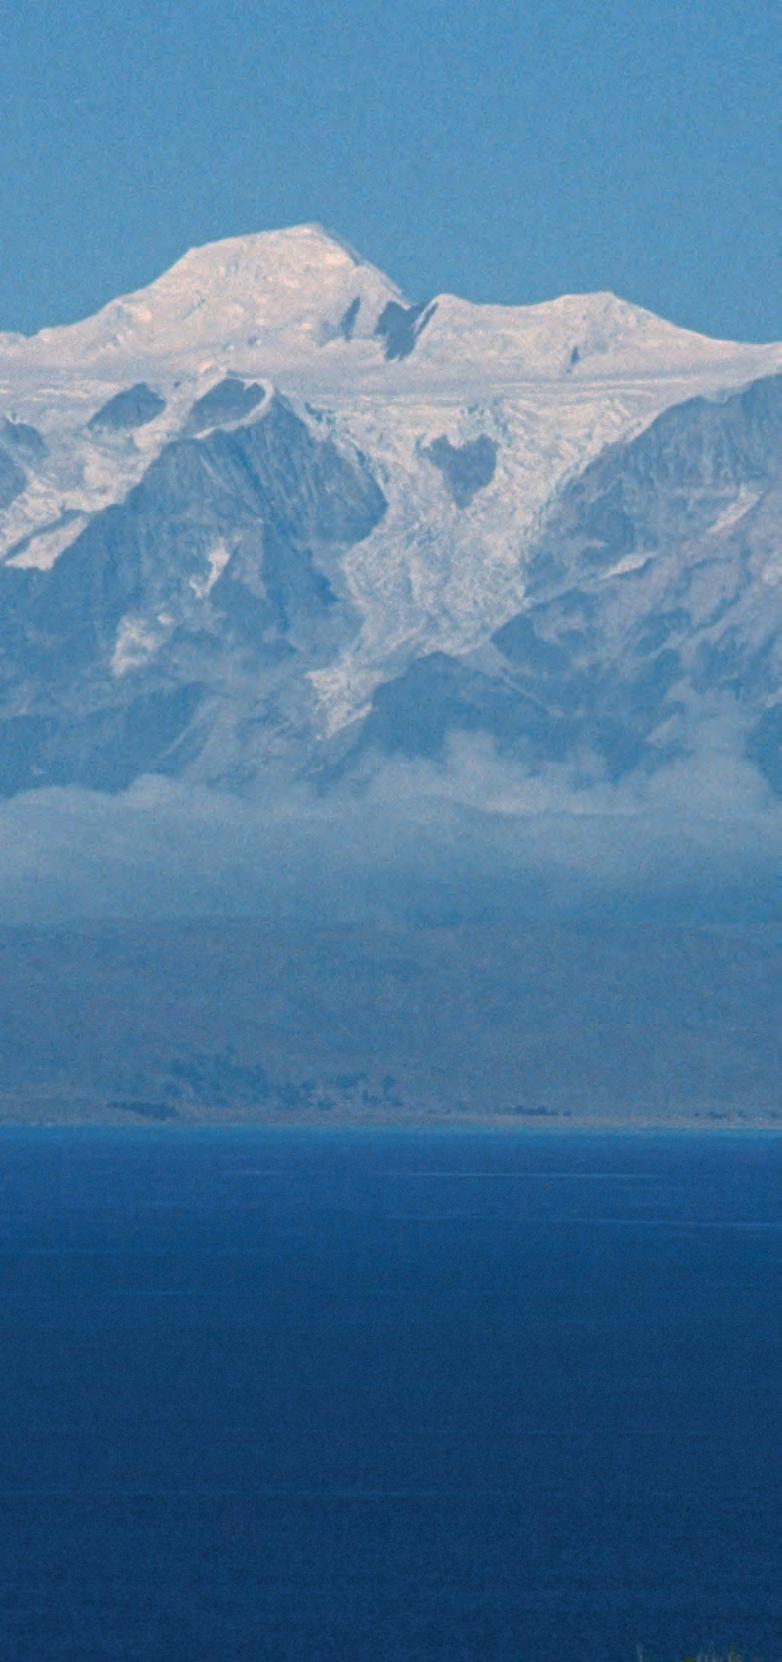
Esquema
1.L’eficàciabiològicaila genèticadepoblacions
2.Elsagentsevolutius
3.Laselecciónatural
4.Lacoevolució
5.L’especiacióoformació denovesespècies
6.Laclassificaciódels organismes
LagrancadenadelsAndess’haaixecat lentamentigradualment,delamateixa maneraquelescostesdel’Atlànticidel Pacífic[…].Alsriusquecorrenper aquestesvallselscorresponmillorelnom detorrents.Entremigdeltopardeles sevesaigüesfurioses,esdistingeixamb claredatidesdellunyelsorollquefan entoparentresilespedresque arrosseguen.Quinaeloqüènciaperal geòleg!
CHARLES R.DARWIN, Viatged’unnaturalista
Lateoriasintèticadel’evoluciópostulaquelesvariacionsgenètiquessorgeixenpermutació,iés enlapoblacióonelseuvaloradaptatiuoeficàciabiològicaperalsindividussóncontrastats.Des d’aquestpuntdevista,espotconsiderarl’evoluciócomelcanvi,alllargdeltemps,delpatrimoni genèticdelespoblacions.Finalment,téllocl’especiació;ésadir,quanlesdiferènciesgenètiques entrepoblacionsaugmentenmésimés,aquestesarribenaconstituir-seennovesespècies.
Enbiologiaresnotésentitsinoésconsideratsotaelprismadel’evolució.
Laideadarwinianadeselecciónaturalimplicaelconcepted’eficàcia biològica,unconcepteclauenl’explicaciódelprocésevolutiu.Elmateix Darwinmanifestava–enadvertirqueusaval’expressió«lluitaperl’existència»enunsentitmetafòric–queaquesta«implicanosolament lavidadel’individu,sinólasevaaptitudielseuèxitadeixardescendència».Nimésnimenys,eficàciabiològicacomacapacitatdesobreviureideixardescendència.
L’eficàciabiològicaéselresultat, sovintassolitdemaneraadditiva,dela capacitatperenvairunhàbitatprèviamentocupatperaltresorganismeso delaintervenciódefactorscomara unaresistènciamésgranalspredadors oalsparàsits,alfred,alacalor,ala humitat,etc.
Lamajoreficàciabiològicad’un genotip(qualsevoldiferènciaenlataxa dereproduccióquenotinguiunabase hereditàrianotécapsignificatevolutiu)comportaunarepresentaciómés grand’aquestgenotipenlageneració següent,endetrimentd’unsaltres.
Ésdesd’aquestaperspectivaquetenenungraninterèslesfreqüènciesdelsgensielsgenotipsenlespoblacionsilasevavariació,que constitueixenl’objected’estudid’unabranca–entreecològicaievolutiva–delagenètica,ladenominada genèticadepoblacions.
1.1.Freqüènciesgèniques
Sisuposem,perraonsd’estudi,lesdiferènciescircumscritesalaconstituciógenètica enunsollocus,ambdosal·lels, A i a (de maneraqueelstresgenotipssón AA,Aa i aa),interessaconèixerles freqüènciesgèniques de A i a,denominades,respectivament, p i q.Enunmomentdeterminat,aquestes
THEODOSIUS DOBZHANSKY,Lagenèticail’origendelesespècies (1967) Lleonsmarins(Monterrey,Califòrnia).
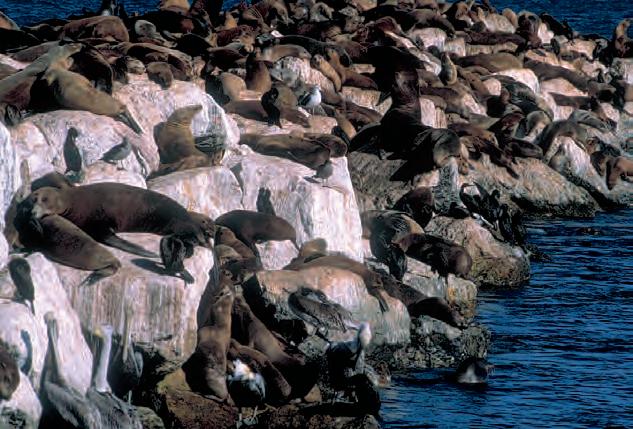
Polimorfismegenèticenelcargol Polimictarcis.
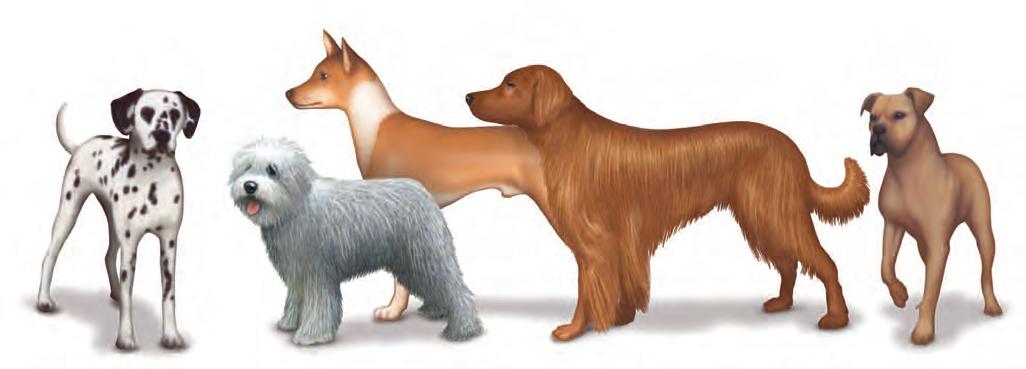
Racescanines:elresultatdelaselecció artificial.Ambelsseusencreuaments,els criadorshanaconseguit,alllargdel temps,separariferevidentlavariabilitat genèticaexistent.
freqüènciespodenser,perexemple,del70%idel30%,respectivament(ésadir, p =0,7i q =0,3).
Sil’eficàciabiològicadelstresgenotipsnoéslamateixa,després d’unageneraciópotsertrobarem,perexemple,que p =0,74ique q =0,26,i,alcapdedues,potserque p =0,77ique q =0,23(lògicament,sempre p + q =1).
Éspossiblequefuturesgeneracionsenlesfreqüènciestorninaser del70%idel30%;peròsiencomptesd’unsollocusambdosal·lels tenimencomptelamiríadadegensquecomponenelpatrimonigenèticdelespoblacionsilasevavarietat,hauremdereconèixerqueés moltimprobablequel’evoluciód’unapoblaciólaretorniaunasituacióanterior.Aquestainferència,tanlògicad’altrabanda,harebutel nomde lleideDollo (comahomenatgealpaleontòlegbelgaLouis Dollo).Ésgairebémésconegudaenunaexpressióbendiferent–però queresponalsmateixosfets–segonslaqual«capestructuraanatòmicaquehaestatperdudaotransformadaeneltranscursdel’evolució noretornamaialasevaformaoriginal».Igualmentexpressiuésun corol·larid’aquestallei:«Enevolucionar,lesespèciesdivergeixen,ineludiblement,lesunesdelesaltres.»
Elpuntdevistagenèticdel’evoluciópermetcopsar-neunaspectemoltimportant: elsubjecteevolutiunoésl’individu,sinóla població .
Pelquefaalcanviqueesprodueixenlesfreqüènciesgèniques,ésmolt importantadonar-sequelareproducciósexual(queoriginaencada generacióelgarbellamentilamescladelsgensdelapoblació)non’és lacausant.
Alcontrari,lareproducciósexualnocanvia,persimateixa,lesfreqüènciesgèniques,jaque«atesoselsal·lels A i a d’unúniclocus,quan elsindividuss’encreuenal’atzarienabsènciadefactorsevolutius,les
sevesfreqüències p i q romanenconstantsdegeneracióengeneració, comtambéhofanlesfreqüènciesgenotípiques(ofreqüènciesdels genotips AA,Aa i aa),queensónunaconseqüència».Aquestaafirmació,fàcilmentdemostrable,constitueixladenominada lleide Hardy-Weinberg (perquèvaserdesenvolupada,l’any1908,demaneraindependentpelmatemàticbritànicGodfreyH.Hardyil’antropòlegalemanyWilhelmWeinberg)iéselpuntdepartidadetotalagenèticaevolutiva.
L’afirmaciócontingudaenlalleideHardy-Weinbergrequereix,per complir-se,unaprimeracondicióreferidaal’estructurareproductiva delapoblació:quel’aparellamententreelsindividussiguialeatori (sensequecaptipusd’encreuamenthiestiguifacilitatodificultat). Unapoblacióambaquestescaracterístiquess’anomena demo opanmíctica(la panmixi éslareproducciósexualperaparellamentsfetsa l’atzar).
Unexempledecàlculdelesfreqüènciesgèniquesigenotípiques
Algunespersones(portadoresd’ungendominant T)trobenamargantunasoluciódiluïdadelproductefeniltiocarbamida,oPTC,mentrequealtres(homozigotsrecessius tt)sónincapacesdereconèixer-hiaquestsabor.Enunapoblació estudiada,el70%notavenelgustamargiel30%noelnotaven.
Sianomenem p lafreqüènciadelgen T i q lade t,podemestablir(suposant quehihagipanmixi,jaque,comquelamajorpartdelagentdesconeixlareaccióalPTC,elsmatrimonisserien,peraaquestcaràcter,aleatoris)laigualtat següent:
q = √Q= √0,3
enquè Q éslafreqüència tt; H,lafreqüència Tt; P,lafreqüència TT; P + H + Q =1.
Si q = √0,3=0,55, p =0,45(perquè p + q =1).
Pertant:
H =2pq =2·0,45·0,55=0,495
P = p2 =(0,45)2 =0,2025
Sianomenem P, H i Q les freqüènciesgenotípiques (delsgenotips, respectivament, AA,Aa i aa),lesfreqüènciesgèniquespodenexpressar-seenfunciód’aquelles: p = P +1/2 H i q = Q +1/2 H
Lavariabilitatgenèticaexistentenel dibuixdelacloscadelcargol Cepaea nemoralis ésmoltgran.Enbonapart s’explicaperselecciónatural:eldibuixde lacloscapermetqueelscargolssiguin crípticsambelfonsenambients diferents,iaixòelsprotegeixdelsseus depredadorsnaturals,quesónocellsdel tipusdelesmallerengues.Éspossibleque tambésigui,enpart,resultatdeladeriva genètica.
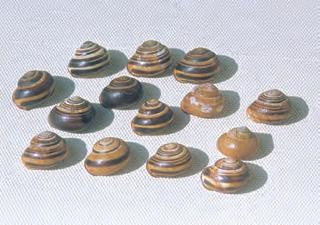
Elsagentsevolutius.Lesfletxesindiquenel sentitdelscanvisoriginatsapartirdeles poblacionsoriginals(decolormésfosc).
Encasquehihagidominància(A > a)isiguiimpossibledistingir elsgenotips AA i Aa,aleshores,comespotarribarademostrarfàcilment,percalcularlesfreqüènciesgèniquescalsuposarquel’aparellamentésaleatori(encascontrari,elcàlculnoésvàlid),ipertant:
Pressiódemutació
i,comque p + q =1, p =1– q
L’enfocamentgenèticdel’evolucióobligaaplantejar-seduespreguntesfonamentals:quinésl’origendeladiversitatgenèticaiquinessón lescausesdelcanvidelesfreqüènciesgèniques.
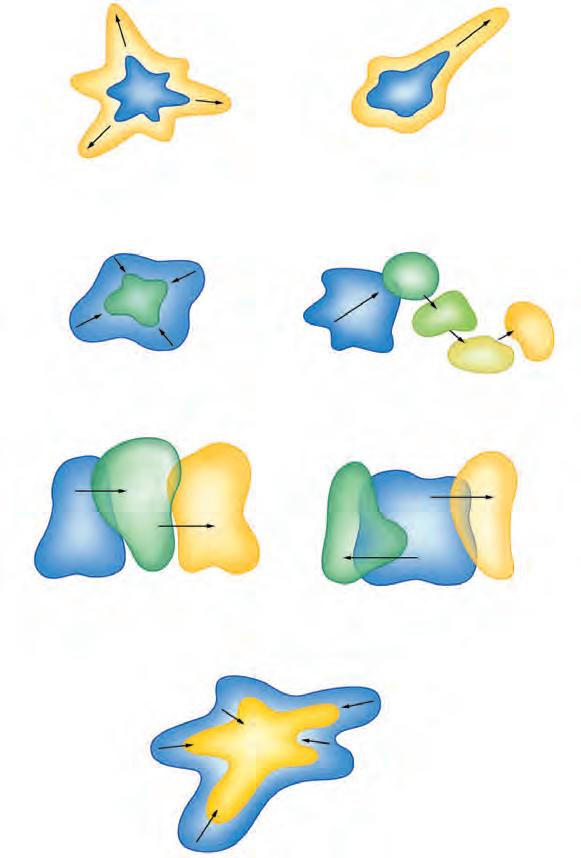
Derivagenètica
Derivagenètica
Selecciódireccional
Selecciódisruptiva
Seleccióestabilitzadora
Lesmutacionssónlarespostaalaprimerapregunta.Perlasevapart,lareproducciósexualaugmentaladiversitat.No ésunagentevolutiu,peròsíqueésun poderósagentd’adaptabilitat.Ésadir,per mitjàdelsexe,lespoblacionsaugmenten ladiversitatqueelshadepermetreadaptar-seievolucionar.
Elsprincipals agentsevolutius sónla pressiódemutació ,el fluxgènic ,la derivagenètica ila selecciónatural ,que actuensobrepoblacionssovintaïllades.Els agentsevolutiusmodifiquenlesfreqüències delsgensdelespoblacions.Endeterminadescondicions,podenesdevenirimportantsalgunsaltresagents,comelscasosde la poliploïdia enelmónvegetalolaseleccióartificialperpartdelscriadorsd’espèciesdomèstiques.
2.1.Lapressiódemutació
Lesmutacionssóncanvissobtatsdefragmentsdelmaterialhereditari.Caldistingir les mutacionsnorecurrents –esdevenimentsaïllatsoesporàdicsqueesprodueixen unasolavegada–,lesquals,consideradesen conjunt,tenenmoltpocainfluènciaevolu-
tiva,deles mutacionsrecurrents,lesqualsesdonenambunafreqüènciadeterminada.Malgratquesolserpetita,lapressióqueexerceixenaquestesmutacionstéunagranimportànciaevolutiva.Encara quesónfenòmensaleatoris,algunesmutacionsdeterminencanvisfavorablesqueseranseleccionats.
Quanel1878esvacomençaraedificarelprimermuseupúblicd’històrianaturaldeBarcelona,elMuseuMartorell–avuiMuseudeGeologia–delparcdela Ciutadella,l’Ajuntamentvaencarregarlesestàtuesdedosnaturalistescèlebres perpresidir-ne,abandaibanda,laportaprincipal.Laprimeraestàtuaésdel botànicJaumeSalvadorilasegonaésdel’enginyermilitar,geògrafinaturalistaFélixdeAzara.
L’aragonèsFélixdeAzara(1746-1821)foul’espanyolméscitatenlesobres deCharlesR.Darwin.Desprésd’haverestudiataBarcelona,anà,enqualitat d’enginyermilitar,al’AmèricadelSud,onvaromandrevintanys.
Quanhivaarribar,delafaunasud-americanahodesconeixiagairebétot, peròbenaviats’hiinteressàidesprésd’anysdepacientsobservacionsn’arribàa serunexpertfinsalpuntdefernotarmoltsdelserrorspresentsenlagran HistòriaNatural deBuffon,elsúmmumdelsconeixementsfaunísticsdel’època. Iésqueelmèritdelatascacientíficad’Azararesideixenlaseva«extraordinàriaaportacióalazoologiadescriptiva»,especialmentpelquefaalesausi alsmamífers,quepublicàambelstítolsd’Apuntamientosparalahistoria naturaldeloscuadrúpedosdelParaguayyRíodelaPlata i ApuntamientosparalahistorianaturaldelospáxarosdelParaguayyRíodelaPlata, obresenquèhihamoltesdescripcionsd’animalssud-americansqueencara avuidiasónlabasedelaseva identificaciócomaespèciesperla precisióambquèhisóndescrits lasevamorfologia,lasevabiologia ielseucomportament.
PeròAzaranoeslimitaala descripció,sinóque,apartirdel quadredelanaturaamericana, discorresobrelessevescaracterístiques,criticalesexageracionsde Buffonapropòsitdelaimportànciadelclimacomafactordecanvio,interessatsobretotperl’origen delesvariacionsdelsanimalsen domesticitatienllibertat,formula perprimeravegada–talcomli reconeixDarwin–lesideesdeseleccióartificialide mutació
FélixdeAzara, esculturad’Eduard BaptistaAlentornsituadaalafaçanadel MuseudeGeologia(MuseuMartorell)de Barcelona.
Launitatd’evolucióéslapoblació,perquèlespoblacionssolenestar parcialmentaïlladesdelarestadepoblacionsdel’espècie.S’enténper fluxgènic elpasdegens,enunadeterminadadirecció,desd’una poblacióaunaaltra.
Elfluxgènicpottenirllocper migració,quanesdónaentrepoblacionsseparadesfísicament,opelpas,enunapoblaciógran,delsgens desd’unextremfinsaunaltreper encreuamentssuccessius entre individusfronterers(suposem,perexemple,uninsectepocvolador quehabital’extremd’unapoblacióques’esténsobreunterritoride 1000kmdellarg;aquestindividunotégairebécapprobabilitatd’aparellar-seambundel’altreextrem,peròsíquehihalapossibilitat, encanvi,queelsgensd’unextrempuguinarribar,perencreuaments successius,al’altre).
Al’interiordelespoblacionsgrans,elfluxgènicoriginasovint clines ogradientsdevariaciód’uncaràcterdeterminatalllargd’unatambédeterminadadirecciógeogràfica.Lesclinessónmantingudesper selecció(comenelcasdelavariaciónord-sudenlagrandàriacorporaldelesguineusialtresespècies,queobeeixacausestèrmiques).
Lapoliploïdia,unagentevolutiu?
La poliploïdia ésraraentreelsanimals;encanvi,entrelesplantesésun importantfactord’apariciód’espèciesnoves(escalculaquemésd’un30% delesplantessuperiorssónpoliploïdiques).Lapoliploïdiaésunavariant d’especiacióbenràpida,querepelnomd’especiacióquàntica
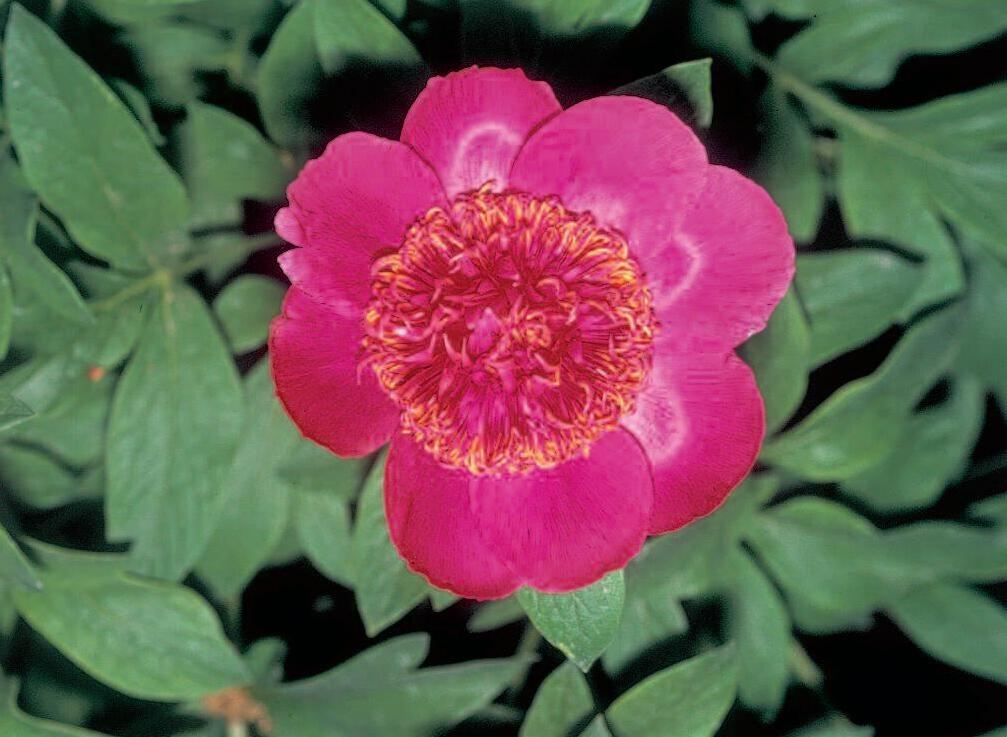
Sovintelspoliploidesvegetals sorgeixenperduplicaciócromosòmicaenunhíbriddeduesespècies diferents;enaquestcas,totselscromosomestenenunhomòlegambel qualpodenaparellar-sedurantla meiosi,ilaplantaqueenresulta és,pertant,benfèrtil.Tambées podenoriginarperirregularitats durantlaformaciódelescèl·lules germinalsoperduplicacióespontàniadelscromosomes.
Avuisabemqueplantescultivadesimportants,seleccionadesal llargdelssegles,sónpoliploides.Els éssershumansleshemseleccionat pelseuvigormésgran(mésllavors, fruitsmésgrossos,etc.).Enelcas
delblat,algunesdelesformesmésusadesavuidiasónl’anomenatblatdur o Triticumdurum,queésuntetraploide,ielblatcomúo Triticumaestivum,unhexaploide.
Precisamentperquèelspoliploidesvegetalsacostumenasermésgrossos, moltesvarietatsvegetalscultivadesenl’actualitat(patatera,maduixera,etc.) sónpoliploidesobtingutsdemaneraexpressa(totaprofitantquehihasubstànciesque–comlacolquicina–bloquegenlamitosiabansqueelscromosomesesreparteixinentrelescèl·lulesfilles).
Avegades,quanestractadeplantesquepodenserpropagadesvegetativament,s’usenpoliploidesdenombresenardecromosomes,laqualcosa,al mateixtempsquelesfacompletamentestèrils,permetobtenir-nefruitssense llavors(bananes,síndries,etc.).
Adiferènciad’altresfactorsevolutius,la derivagenètica ésunfactor dispersiuinodireccionaldecanvidelesfreqüènciesgèniques.Consisteixenelcanvidelesfreqüènciesgèniquesdelespoblacionscom aconseqüènciadel’errordemostratgequeesprodueixencadageneració,perquèelsgensquepassenaladescendèncianosóntotsels presents,sinóunamostradelsquehiha.Comqualsevolmostratge, lareproducciócomportaunerrordedesviacióaleatori,mésgrancom méspetitasiguilamostra.
Laderivaés nodireccional perquèladirecciódelcanvinoéspredictibleambantelaciói,amés,potvariard’unageneracióalasegüent iés dispersiva perquè,siconsideremdiversespoblacions,produeix unadispersiódelesfreqüènciesgèniquesentreaquestes(n’augmenta lesdiferències).
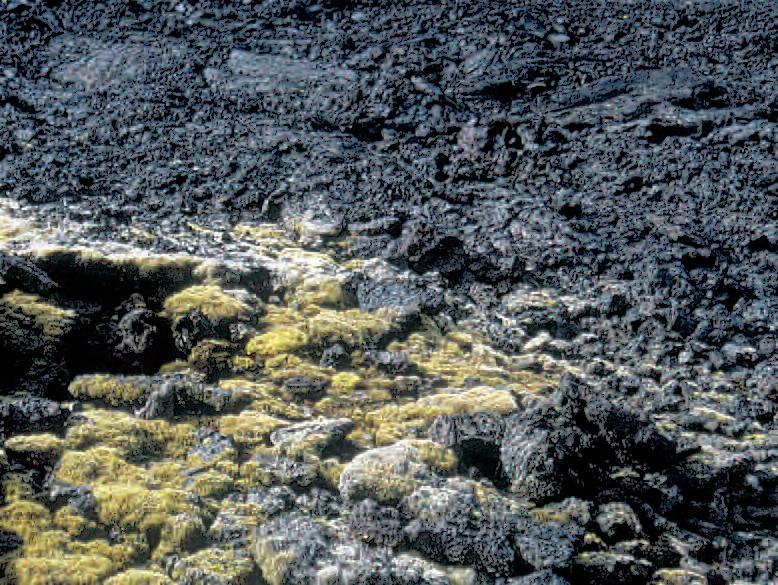
El Beagle, avaratienreparació,enel transcursdelviatgedeDarwin.
Poblamentiniciald’unacoladavolcànica perpartdelíquensiplantescriptògames.
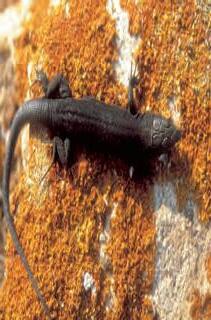
Comaconseqüènciadelqueacabemdedir,elsefectesdeladerivagenèticasónelssegüents:
–Pelquefaacadapoblacióconcreta, l’augmentdel’homogeneïtat (perquèambelssuccessiuserrorsdemostratgeesprodueixenpèrdues devariabilitatquesónirreversiblessilapoblacióestàaïllada)i,per tant,del’homozigosi.
–Aescalamésgeneral, ladiferenciaciódelesdiversespoblacions aïllades,perladispersiódelesfreqüènciesgèniquesentrelesdiferents poblacions.
Elsefectesdeladerivasónmoltimportants,jaqueladisminució delnombred’individusreproductorsésunfetrelativamentfreqüent. N’hihaproudeconsiderar-nedoscasosextrems:
–Els collsd’ampolla oreduccionsdràstiquesdelsefectiusreproductorspelsqualspassenmoltespoblacionsdesprésd’unaepidèmiao unaltreestrallgreu(aiguat,incendi,etc.).
–L’efectefundador,queconsisteixenelfetquemoltespoblacions decaràcterinsular(enunsentitgeogràficofuncional)s’originensovint apartirdemoltpocsindividusmigradors(enelcasmésextrem,a partird’unasolafemellagràvida)quearribenacolonitzarunnouhàbitat.
Enqualsevolcas,lapoblacióresultant,siaconsegueixdesobreviure,quedamarcadaperlescaracterístiquesgenètiquesdelsprogenitors, quesónunamostraparticulardelapoblacióinicial.
Esdiuqueenunapoblacióhiha consanguinitat quanlaproporciód’aparellamentsentreindividusemparentatsésmésaltadelquecaldriaesperarsi fossinaleatoris.Comqueelsparentssóngenèticamentméssimilarsqueels individusnoemparentats,laconsanguinitatocasional’augmentdelafreqüènciad’homozigots.Sovintlaconsanguinitatesmesuraperl’anomenat coeficientdeconsanguinitat oprobabilitatqueunindividurebi,enunlocus individual,dosal·lels«idènticsperdescendència»,ésadir,quesiguincòpia d’unmateixal·lelportatperunavantpassatcomú.
Comésfàcildededuir,aquestcoeficientésiguala1/2peraladescendència delsorganismesambautofecundacióiiguala1/4enladescendènciad’un encreuamententregermans(deparesnoemparentats).Elcoeficientbaixaa1/8 peraladescendènciadel’aparellamententreoncleinebodaotiainebotiper aladelscosinsgermansdobles.Peraladescendènciadecosinsgermansés d’1/16,iésd’1/32peralsfillsdel’encreuamententreoncleinebodaotiainebotensegongrau,mentrequeperalscosinssegonsésd’1/64.Laconsanguinitat
haestatunatècnicarepetidament empradaenagriculturairamaderia pertaldeperpetuarifixarelscaràcters desitjats(comaralaproducciódellet olagrandàriadelallavor).
L’augmentdelparentiuocasionat peraquestmotiusovintdesemboca, però,enunadepressióperconsanguinitatqueredueixl’eficàciabiològica peracumulació,enhomozigosi,de gensdeleterisrecessius.
Percombatreaquestadepressiócal, coms’acostumaadir,«introduirsang nova»,ésadir,augmentarlavariabilitatgenèticadelapoblació,permitjà delahibridació.
Tipusd’encreuament
Autofecundació
Coeficientsdeconsanguinitat
1/2
Germans(complets) 1/8
1/4
Oncle neboda 1/8
Tia nebot
Cosinsgermansdobles 1/16
Oncle nebodaensegongrau
Tia nebotensegongrau
1/8
Cosinsgermans 1/32 1/32 1/64
Cosinssegons
Enlessocietatshumaness’hadesenvolupatdesdemoltanticeltabúdel’incest,queprohibeixl’encreuamententre elsparentsméspropers(entreparesifills,oentregermans),totiqueendeterminatsmomentshistòricsaqueststipusd’encreuaments,comenelcasdels faraonsdel’anticEgipte,hanestatfreqüents.Leslleisilesreligionsprohibeixen enmoltscasoselscasamentsentreonclesinebots,oentrecosinsgermansosegons.
Enelmónoccidentalcristià,l’Esglésiacatòlicas’hareservattradicionalment lapotestatdeconcedirdispensaperalsmatrimonisentreonclesinebotsoentre cosins(sovintunsimpletràmit;mésestricteendeterminatsperíodeshistòrics). Precisament,l’estudidelaconsanguinitatapartirdelessol·licitudsdedispensa ifesdebaptismeacumuladesenelsregistresparroquialshaconstituïtunfructífercampderecercaperal’estudiantropològicdelespoblacionshumanes.
Elsmatrimonisconsanguinis,afavorits perl’ambientcultural,hohanestattambé,encertsmomentshistòrics,permotius econòmics,comés,perexemple,latendènciaaaugmentar,oanodividir,els patrimonisfamiliars.Lesfamíliesreials ensóntambéunexempleparadigmàtic.
Lesconseqüènciesbiològiquesdela consanguinitatsón,enl’espèciehumana iglobalmentparlant,lesmateixesqueen lesaltresespècies:l’augmentdelafreqüènciad’homozigotsidelesmalalties hereditàriesrecessives.Enaquestsentit, l’elevadaincidènciadel’hemofíliaentre lareialesaeuropean’ésunclarexponent. Perexemple,escalculaquelaincidència denadonsdefectuososés,pertermemitjà,eldoblequanelsparessóncosinsgermansquequannosónparents.
OsirisilasevagermanaiesposaIsis.
Cobertad’unadelesprimeresedicions delllibre L’origendel’home, editadaa Barcelona.
Efectedelsdiferentstipusdeselecció sobrelespoblacionsnaturals.
La selecciónatural tendeixaeliminarelsindividusmenysadaptats.Demaneraméstècnica,esdiuquehihaselecciónatural quannototselsindividusd’unapoblaciótenenlamateixaeficàciabiològicaocapacitatdedeixardescendència(sempreque aixòdepenguidelseugenotip).
Laselecciónaturalactuasobreelsfenotips,peròafectales proporcionsdelsdiferentsgenotips.Malgratquehihadiversostipusdeselecciónatural,elsefectessónsempreelsmateixos:lafreqüènciad’algunsgenotipsaugmentaendetrimentde lad’altres.Laselecciónaturalésl’agentevolutiuqueadapta demaneraespecíficalespoblacionsalsseusambientsimmediats.
Laintensitatdelaseleccióesmesurapermitjàdel’anomenat coeficientdeselecció (s),queexpressalareducciódel’eficàciabiològica.Així,siequipareml’eficàciabiològicadelgenotipmésbenadaptata1(100%),ladelgenotipcontraelqual actualaseleccióseràd’1– s.Sovintelscoeficientsdeselecciórealssónmoltpetits,excepteenelcasdelsgensletals,en quèpotarribara s =1.
Elsprincipalstipusdeselecciónaturalsónla direccional, l’equilibradora ila disruptiva .Actualment,se’nconeixen algunsexemplesrealsbendocumentats.
La selecciódireccional éslaqueafavoreixunfenotipextrem(elmés alt,elméspetit,etc.).Aquesttipusdeselecciótécomaconseqüèncialavariacióprogressivadelapoblacióenladirecciódelapressió deselecció.
Estabilitzadora
Direccional Disruptiva
Abansdecomençaraactuar
Desprésdelaselecció
La seleccióequilibradora éslaqueafavoreixelsfenotipsintermedis, ésadir,elsheterozigots.Adiferènciadelsaltrestipusdeselecció, aquestamantéelsdosal·lelsenfreqüènciesaltes.
Laseleccióequilibradoramantémoltsdels polimorfismes genètics existentsenlespoblacions,ésadir,l’existènciadedosomésfenotips distintsdebasegenètica.
Sovintelsheterozigotssón«superiors»(«superioritatdelsheterozigots»),perquèelfetdetenirelsdosgenselspermetreunirelsavantatgesqueproporcionenl’unil’altre.Ladenominada heterosi,osuperioritatdelshíbridsentreracesdiferents,téunagranimportànciaen agricultura;així,perexemple,peralconreudelblatdemoros’usen llavorshíbrides.
3.3.Laselecciódisruptiva
La selecciódisruptiva ,queéslamenyscomuna,escaracteritzaper afavorirelsdosextrems.Téimportànciacomamecanismeafavoridor delpolimorfisme.Encasosextremspotoriginar,perfragmentacióde lespoblacions,duesomésespèciesnoves.
Càlculdelamagnituddelaselecció
Éslògicpensarquesielcoeficientdeselecció s (ésadir,laintensitatdelaselecció)ésgran,elcanvidelesfreqüènciesgèniquesserànotable.Aixòéscert,però hihaunaltrefactorquecaltenirencompte:noéspaselmateixsielgencontraelqualactualaseleccióésdominantorecessiu(osiéselcas,silaseleccióés afavordelsheterozigots).Laseleccióésmoltméseficaçcontraungendominant, perquèsiésrecessiu,moltesdelescòpiespresentsenlapoblacióromanen«ocultes»enelsheterozigots.
Sianomenem q lafreqüènciade A2 contraelqualactualaseleccióambun coeficient s,elcanvide q (unincrementdesignenegatiu),alcapd’unageneració,seràelsegüent:
–Dominànciaiseleccióafavordeldominant:
∆q= –sq2(1–q) 1–sq2
–Dominànciaiseleccióafavordelrecessiu:
∆q= sq2(1 –q) 1–s(1 –q2)
–Seleccióafavordelsheterozigots:
∆q= pq(s1p–s2q) 1–s1p2 –s2q2
(1–s1 = eficàciabiològica A1A1;1–s2 = eficàciabiològica A2A2.)
Esparlade polimorfisme quanenuna poblaciócoexisteixenduesomésvariantsclaramentdiferenciables.Així,per exemple,l’espèciehumanaéspolimòrficaperalgrupsanguiniAB0,atèsque hihaindividusA,B,ABi0.Depolimorfismesmolecularsd’aqueststipus,detectablesnomésmitjançantprovesbioquímiques,n’hihamoltsexemplesen plantesianimals.Peròhiha,aixímateix, moltsaltrespolimorfismesdecaràcters benconspicus,comeldelacloscadel cargol Cepaea oeldelapapallona Bistonbetularia.Elspolimorfismespoden seratribuïtsadiferènciesgenètiques i,enconseqüència,sónparticularment adequatsperestudiarelsefectesdela selecciónatural.
Laseleccióenacció:melanismeindustrial
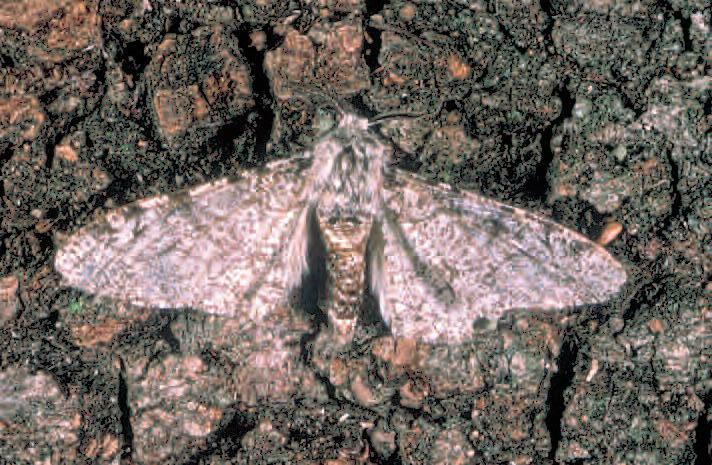
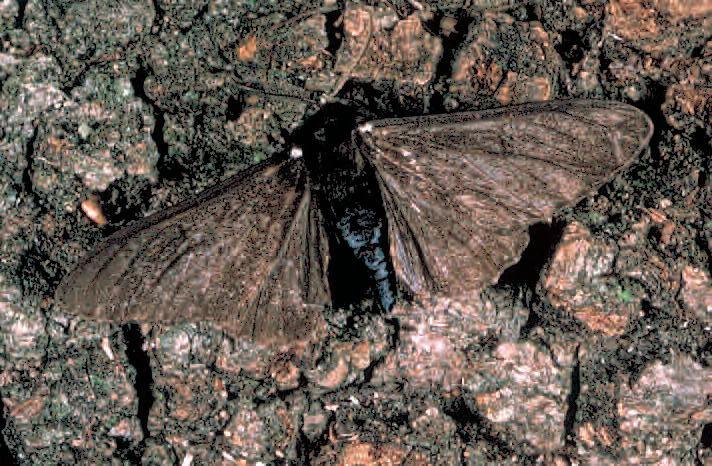
Bistonbetularia, varietatsclara(a) ifosca(b).
Endiferentsespèciesd’insectes,laRevolucióIndustrial,lligadaala utilitzaciódelcarbócomacombustible,vacomportarunennegriment,l’anomenat melanismeindustrial,quehaestatespecialment benestudiatenelcasdelapapallonad’activitatnocturna Biston betularia,comunaalaGranBretanya.
Laformatípicad’aquestinsectetélesalesblanquinosesamb petitestaquesfosques,iresultagairebéinvisiblesobrel’escorçaplatejadadelsbedolls,onacostumaaromandreduranteldia.Enles col·leccionsantigues,del’èpocavictoriana,aquestaformaésl’únicapresent.L’any1849vasercapturatunprimerexemplarfoscprop deManchester,icinquantaanysméstardel98%o99%dels individuseren,enaquellaregió,foscos.Elmateixvapassarenaltres regionsindustrials.
Elsestudisgenèticshanrevelatquelaformafoscao carbonaria ésproduïdaperungendominantsobreelseual·lelrecessiucausant delaformatípica.Elsestudisdecamprealitzatsambindividus marcatshanposatdemanifestquel’agentselectiuhanestatels ocellsdepredadorsquesen’alimenten.Durantsegles,laformaafavoridahauriaestatlatípica.Amblaindustrialitzacióilacontaminaciódesutgequeennegreixelsencontornsdelesfàbriques,de copivoltalaformafoscapassàateniravantatgeselectiu,jaque enaquestcaslaformaquedestacaéslaclara.Comespodiapreveure,en aquelleszoneson,moltsanysdesprés,esvanimplantarmesuresantipol·lució, laproporciódelaformatípicahaaugmentatmésd’un5%.
Hemoglobinopaties,favismeiselecciónatural
Cadaany,mésd’unquartdemiliódepersonesneixenambalgunaanomalia genèticarelacionadaambl’hemoglobina(Hb).Aquesteshemoglobinopatieses classifiquenendosgransgrups:
a)hemoglobinopatiesdegudesavariantsestructuralsdelescadenesdeglobina,comenelcasdel’hemoglobinafalciforme;
b)talassèmiesotrastornsdelasíntesidel’hemoglobina.
Drepanocitosi oanèmiafalciforme
Lespersoneshomozigòtiquesperaldenominatgen S del’hemoglobinaes veuenafectadesperunaformagreud’anèmiaqueesconeixambelnomde drepanocitosi o anèmiafalciforme.Encanvi,elsheterozigotssóndefenotipnormalinopresentenanèmia(perbéqueaaquestespersoneselscal prendreprecaucionsendeterminadessituacions).Elseugennormalsembla apteperproduirprouhemoglobina,iaquestfetpermetquetinguinun transportd’oxigendeltotsuficient.
Ladenominaciód’hemoglobinafalciforme ésdeguda alfetqueelseritròcitsdelespersonesafectadestenenforma defalçomitjalluna.Aquestsglòbulsvermellscontenen unahemoglobinadiferent,la HbS (del’anglès sickle, falç),degudaaunamutaciópuntualenelgenquecodificaperalasíntesidelescadenesde β-globina.Efectivament,la HbS difereixdel’hemoglobinanormalacausa delasubstituciódelavalinaenposició6perunàcidglutàmicenlacadenadela β-globina.
Aquestamutaciópuntualtéunsefectesmúltiplesi determinaunacascadadeconseqüènciesmoltpernicioses: anèmiagreu,reumatisme,símptomescerebrals,pulmonars,renals,cardíacs,etc.Comquela HbS ésmenys solublequelanormal,tendeixaprecipitar(iaixòfaque elsglòbulsvermellsadquireixinl’aspectefalciforme).Elcos reaccionadestruintaquestescèl·lulesanormals,ise’nderiva l’anèmia.Comqueaquestescèl·lulescirculenmalamenti tendeixenaamuntegar-se,incrementenlaviscositatdela sang,s’acumuleniobstrueixenlesartèriesiobstaculitzen lairrigaciósanguínia.Segonsquinsiguil’òrganafectat,es produeixlafallidarenal,cardíaca,cerebral…Elquadre generaléstangreuquelamajoriadelespersonesmalaltesd’anèmiafalciformeesmorenmoltprematurament.
Podriasemblarsorprenentqueungenambunsefectes tanperniciosossiguitanfreqüent,sobretotendeterminats grupspoblacionals.Enefecte,enalguneszonesd’Àfrica,el gen HbS ésforçaabundant,sobretotenlesregionson sovintejalamalària(unagreumalaltiainfecciosatransmesaperlapicadadelmosquit Anopheles iproduïdaperun protozou–Plasmodium–queviual’interiordelsglòbuls vermells).
Precisament,vaserlacomparaciódelsmapesdedistribuciódelesduesmalaltieslaquevamenarelscientífics capal’explicaciócorrectadel’aparentenigma:hiha«superioritatdelsheterozigots»pelfetquel’hemoglobina S interfereixeneldesenvolupamentdelparàsit,demaneraque sónaquestsheterozigotselsmenysexposatsalsestrallsdel Plasmodium.Enunambientambmalària,doncs,els heterozigotssónelsmésafavorits,demaneraquelaseleccióequilibradoramantéunaaltafreqüènciadelgen mutant.
Freqüència
Encanvi,al’AmèricadelNord,onmoltespersonesprocedentsd’aquelles regionsafricanesvanserportadescomaesclaus,lafreqüènciadelgenperal’hemoglobina S habaixatmolt,jaqueentreelsdescendentsd’aquellsindividusja nohihamalàriai,pertant,l’heterozigotjanoésl’afavorit(percontra,al’AmèricaCentralencarahihazonesonlamalàriaésendèmicaielgen S hiés gairebétanfreqüentcomaleszonesafricanesmésafectadesperlamalària).
a)Distribuciódelamalària.
b)Distribuciódel’al·leldel’hemoglobinaS.
Els Plasmodium sónendoparàsitscel·lulars queviuenal’interiordelsglòbulsvermells.
La talassèmia iel favisme –dues malaltieshereditàriesdiferentsforça comunes–sónmoltfreqüentsalaconcamediterrània(precisamentelmot talassèmia ésunacontraccióde talassa,queengrecsignifica‘mar’,i anèmia).Lestalassèmies–enplural, perquèn’hihademoltsdiferentstipus–constitueixenelgrupméscomú demalaltieshereditàrieshumanes.
Latalassèmiaésparticularmentfreqüentalnordd’Àfrica,Sardenya,Xiprei Grècia(onpropd’un9%delapoblació–ifinsaldobleenalgunesillesdel marJònic–ésportadoradelgenmutantcausantdelamalaltia).Aquestmutant dificultalasíntesicorrectad’algunesdelescadenesproteíniquesdel’hemoglobina.Totiqueelsgensestructuralsperalesglobinesromanenintactes,diferents mutacions(insercions,deleccions…)enaltresgens–situatsenelcromosoma11–ocasionenerrorsenlasevatranscripció(perdesplaçamentsdelapautadelectura,queintrodueixencodonsdeterminacióabansd’horaocanvisenelsintrons quesemblaqueinterfereixenenelprocessamentnormaldel’ARNmissatgerde lesglobines:notranscripciódelgenenARNm,producciód’unARNmnofuncional,produccióinsuficientd’ARNm,etc.).
Lapatologiaés,entotselscasos,similar:undesequilibrienlaproducciódels diferentstipusdeglobinesqueocasional’acumulaciódelsexcedentsmoleculars enlescèl·lulesprecursoresdelsglòbulsvermells.
L’anomenada talassèmiamajor,pròpiadel’homozigot,ésmoltgreu,isino éstractadalasupervivènciaésimprobablemésenllàdelsvintanys.
Encanvi,elsindividusafectatsde talassèmiamenor, ésadir,elsheterozigotsportadorsdelgenmutant,noexperimentencapsímptomaanòmal.De manerasimilaralcasdel’anèmiafalciforme,elmantenimentalllargdeltemps d’ungentanpernicióss’haproduïtperlaproteccióqueaquestgenconfereixa l’heterozigotenfrontdelpaludisme,unamalaltiaquehatingutunagranprevalençaal’àreamediterrània.
Distribuciódelatalassèmiaalspaïsos mediterranis(nombreanualdenadons afectats).
El favisme ésunaaltramalaltiahereditàriaproduïdaperungenrecessiulligatalsexe(fetqueexplicalamajorprevalençadelasíndromeentreelshomes) queocasionareaccionsal·lèrgiquesgreus,ambhemòlisi,alpol·lendelafavera ialconsumdefaves.
Elmecanismegeneticomolecularéselsegüent:elmutantperalfavismedeterminaunainsuficiènciadelasíntesidelaG6PDoglucosa-6-fosfat-deshidrogenasadelsglòbulsvermells,unenzimdelcatabolismeanaeròbicdelaglucosaque, encircumstànciesnormals,protegeixl’hemoglobinaquecontenenelseritròcits.Si l’enzimmanca,elsagentsoxidantspresentsenlesfavesocasionenladestruccióde l’hemoglobina.Moltfreqüentalesillesmediterrànies–especialmentaRodes,on mésd’unaquartapartdelshomeselpateixen–,lapersistènciadelfavismes’explicatambéperlaproteccióqueelgenconfereixenfrontdelpaludisme.
Ambelnomde coevolució esdesignal’evolucióconjuntadeduesomés espèciesogrupsd’espèciesecològicamentrelacionats.N’existeixenmoltíssimsexemples,començantperlesrelacionsdepredador-presaolesparticularsrelacionsques’estableixenentrelesfaunesilesfloresinsulars.
PrenguemelcasdelesillesHawaiicomamodel.Estractad’undels arxipèlagsmésremots(l’illagran–laquedónanomalconjunt–dista 5500kmd’Àsiai3200del’AmèricadelNord)ambunesbiotesben particulars:nohihaconíferes,nipeixosd’aiguadolça,niamfibis,nirèptilsnicapmamíferterrestreoriginarisd’aquellesilles(elsquehihaara hihanestatportatsperl’ésserhumà).
Lamancademamífersherbívorsconduíl’evoluciódelesplantesde l’arxipèlagcapal’absènciad’espèciesverinosesioloroses(elscompostos aromàticsdelsvegetalssón,totsovint,senyalsdefensius),finsal’extrem quealesHawaiilesespèciesdelafamíliadeleslabiadesquehisónpresentssóncompletamentinodores,totiqueésunafamíliacaracteritzada,precisament,perlesfragànciesqueexhalenelsseusrepresentants (espígol,farigola,menta,romaní,sàlvia,etc.).
Demanerasimilar,moltesformesvegetalsequivalentsa lesqueenelcontinentestanarmades d’espinesvulnerants, alesHawaiisóninermes(unfenomen quenoéspasexclusiud’aquellarxipèlag;perexemple,les romegueresdeles illesSandwichnotenenagullons).
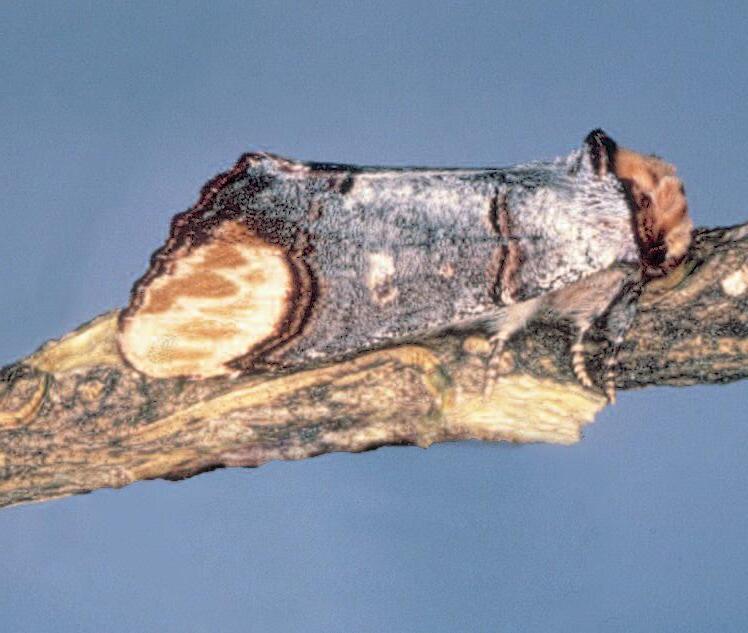
Phalerabucephala (insectelepidòpter).
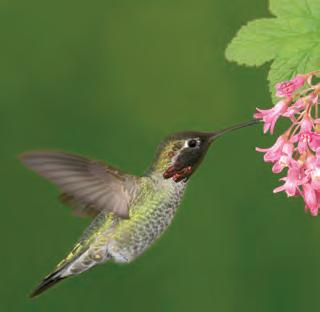
Avegades,lacoevolucióésmésíntima.D’aixòdarrern’hihaexemplesmoltdiversos,desdelabioquímica(aixípotinterpretar-sel’origen delesvitamines)finsaestretesrelacionsecològiques,entrelesqualsdestaquenlesadaptacionsanatomicofuncionalsrelacionadesambla pol·linització,olesquepodencatalogar-se,perdir-hoaixí,deguerra químicaentreplantesianimals.Moltesorquídiesmediterràniessónfertilitzadesperinsectesdelgrupdelesabelles.Enlasevacoevolució,la florqueatraul’abellot,imitantlafemella,liadhereixelpol·lenal’esquenaquanaquell,confós,intentacopularamblaflor.
Fixem-nosaraenlahistòriadel’evolucióconjuntaquehanexperimentat–enl’Amèricatropical–lespapallones Heliconius iles Passiflora oflorsdelapassió.Lesfemellesd’aquestespapallonesponenelsousen laflordeles Passiflora.Quanlalarvaneix,sen’alimentai,enfer-ho, adquireixlessubstànciestòxiquesdelvegetal,quealseutornlaprotegeixendelsocellsinsectívors.
Elsestudisdetallatsrevelenque,sovint,cadaespèciedepapallona toleraúnicamenteltòxicd’unaespèciede Passiflora,enun statuquo fruit d’unallargahistòria:perdefensar-sedelsatacsalgunesflorsdelapassió handesenvolupatpèlsmoltvulnerants,queresultenfatalsperaleserugues;d’altreshanformatnectarisqueatreuenlesformigues,lesquals,al seutorn,lesajudenaforagitarleseruguesimolestenlesfemellesque intentenpondre-hielsous.
Altres Passiflora handesenvolupatpetitesestructuresfloralstansimilarsenlaformaielcoloralsousdeles Heliconius que,enveure-lesocupades,lesfemellesdesisteixendepondre-hielsautènticsous.Finsitot algunesplantespresentenunesfullesespecialsenquèlesfemellessesentenatretesapondre-hielsous.Uncophohanfet,però,laplantaesdesprènd’aquellapesadacàrregailapostaesperd.
a) Hemaris,papallonaesfíngida mimèticad’abellot.
b) Passiflora. c)Papallona Heliconius
Moltsovint,elresultat–alllargdel’evolució–delsfenòmensdecoevoluciónohaestatpasanul·larominimitzarladepredació;alcontrari, haajudataconfigurarunaorganitzaciócomplexadelsecosistemesfinsal puntque,commésanticimadurésunecosistema,mésabundantsi diversificadeshisónlesrelacionscoevolutives,perquèsónuntestimoni delasevaestabilitatalllargdelstemps.
Evolucióigenèticaclàssica:exemplesdemonohibridismeidihibridisme
Laconsideraciódelsfenòmensgenèticssotaelprismadel’evolucióidelsseus mecanismespermetconsiderarnovesperspectivesenl’estudidelsgensilesseves manifestacionsfenotípiques,desdelscàlculsdelesfreqüènciesfinsalacomprensiódelsfactorsquelesdeterminen.Vegem-nealgunsexemplesenelsproblemesresoltssegüents.
Exemple1
Lafibrosicísticaomucoviscidosiésunaanomaliadeterminadaperungen autosòmicrecessiu.Aproximadamentel5%delapoblacióésheterozigotper aaquestgen.Ditd’unaaltramanera,laprobabilitatqueunindividuqualsevol–senseantecedentsfamiliarsdemucoviscidosi–siguiheterozigotés d’1/20.Enconseqüència,podempreguntar-nos:
a)Quinaéslaprobabilitatqueunaparellaqualsevol(senseantecedents conegutsdemucoviscidosienlafamília)tinguiunfillafectatperaquesta malaltia?Comcalferaquestcàlcul?
b)Iquinaéslaprobabilitat,sielpareolamaretenenungermàafectat permucoviscidosi?
c)Isitotsdostenenungermàafectat?
d)Malgratdeterminarunamalaltiasevera,lafreqüènciad’aquestgenés relativamentalta.Totiqueesdesconeixsielsindividusheterozigotspresentenalgunavantatgeendeterminadessituacionsambientals(coms’esdevé,per exemple,ambladrepanocitosi),enpodriaserunacausa?
e)Elfetqueelgensiguirecessiu,n’afavoreixoendificultaelprocésd’eliminacióperselecciónatural?
Resposta:
a)Laprobabilitatdetrobar-sedosheterozigotsésd’1/20 1/20.Delsdescendents,1/4seranhomozigotsrecessius.Ésadir,un0,0625%delsfills (1/20 1/20 1/4=1/1600=0,0625%).
b)Primerdeduïmquesiunestàsaperòtéungermàhomozigotrecessiu peralamalaltia,estenen2/4deprobabilitatsdeserheterozigot.Llavors, 2/3 1/20 1/4=2/240=0,83%.
c)Llavors,2/3 2/3 1/4=4/36=1,11%.
d)Explicarial’alta(entermesrelatius)prevalençadelgenenlespoblacions humanes,perquèmentrequeelshomozigotsrecessiusserienseleccionatsencontra,elsheterozigots,encanvi,resultarienafavorits.
e)Laselecciócontraelsgensrecessiusésmoltméslenta(vegeu-nelafórmulaenlapàgina404)i,enaquestsentit,poceficientperquèelsheterozigots tenenlamateixaeficàciabiològicaqueelshomozigotsperalgennormali, igualqueaquests,esreprodueixensenseentrebancs.
Exemple2
LamiopatiadeMiyoshiésunadistròfiamuscular(quesoldebilitarsobretot elsmúsculsdelescames)ocasionadaperunamutacióenelgenquecodifica
Recreacióenceràmicadelabatalladel PuigdeSantaMaria,el1237,enla campanyadelreiJaumeIperconquerir laciutatdeValència.
laproteïnadisferlina,queésnecessàriaperalbondesenvolupamentdeles fibresmusculars.
a)Apartirdel’arbregenealògicespotdeduirelpatród’herènciad’aquestamalaltia.QuinssónelsgenotipsdelsindividusI2,I3,III1,III2iIV2?
b)AlapoblacióvalencianadeSueca(28000habitants),s’hantrobatfinsa 9personesafectadesdemiopatiadeMiyoshi.AlarestadelPaísValencià,ésa dir,aproximadament4857000habitants,noméshiha4casosconegutsmés. Aquestadistròfiaésunamalaltiabenpocfreqüentalarestadelmón:perexemple,alJapóesdónauncaspercada440000habitants.Calculalesfreqüències delamalaltiaalestrescomunitatsesmentades(Sueca,elPaísValenciàielJapó), compara-lesiargumentalapossiblecausadelesdiferències.Digues,enelcasde Sueca,quinainfluènciapothaver-hiexercitelfetque,arrandelaconquesta cristiana,fauns800anys,lapoblacióvaserrepoblada(laCartadepoblació ésde1245)per16famíliesdecolonsprovinentsdelCampdeTarragona.
c)Suposaquedosindividusd’aquestarbregenealògic–concretamentI2 iIII2–sóndaltonians.Recordaqueeldaltonisme,unaincapacitatgenètica perdistingircertscolors,éscausatperungenmutantrecessiuilligatalsexe. Escriuelsgenotipsperalsdosgens,eldeladistròfiadeMiyoshiieldeldaltonisme,delsindividusI1iI2;II1iII2;III1iIII2;iIV1iIV2.
d)L’individuIV1hatingut,ambunadonaquenopateixdistròfia,unfill distròfic.Diguesquinadadaaportaaquestfetpercompletarlarespostaanterior.
e)Ladonadelapreguntaanteriortampocnoésdaltoniana,peròsíque hoéselseupare.Coneixentaquestadada,diguesquinsseranelsfenotipsper aaquestsdoscaràctersilesproporcionscorresponentsalconjuntdelsfillsque podentenirl’individuIV1ilasevaparella.
a)Estractad’unpatród’herènciarecessiuiautosòmic.Nopotserlligatal sexe,perquèllavorsl’individuIII2hauriadepatirlamalaltiapertalquela donaIV2latinguéstambé.Tampocnopotserdominantperquè,simésno, undelsdosmembresdelaparellaIIIhauriadeserheterozigoti,enaquestcas, patiria(opatirien,sihofossintotsdos)lamalaltia.Sianomenem M l’al·lel normali m elgenmutantperaaquellaproteïnamuscular,elsgenotipsserien mm peralsindividusI2,I3iIV2i Mm peralsindividusIII1iIII2.
b)Lesfreqüènciessónaquestes:
PaísValencià Japó
Hihaunagrandiferència:lafreqüènciaalJapóésd’unes160vegades inferioraladeSueca,iladelarestadelPaísValenciàencaraésméspetita, unes400vegadesinferior.Lacausalapodríemtrobarenladerivagenètica i,mésconcretament,enunefectefundador.Algunsdelsinicialspobladors tarragoninsestarienafectatsohaurienestatportadorsd’aquellal·lelmutant. Entractar-sed’unacomunitatmoltreduïda,s’hauriaproduïtunagranendogàmia,laqualhauriacomportat:1)elmantenimentdel’elevadaiatípica freqüènciadelgenmutant;2)l’augmentdel’homozigosii,pertant,delscasos demalaltia;i3)unaseleccióencontrad’aquestgenrecessiuamblacorresponentreducciódelasevafreqüència;unprocésdedisminuciótanmateixlent, atesalanaturalesad’aquelltipusdeselecció,perbéqueafavoritperlapresènciadenouspobladors.
c)Sianomenem d elgendeldaltonismei D elseual·lelnormal(ubicats alcromosomaX),elsgenotipsseranaquests:
I1: M/m, D/D
I2: m/m, d/Y
II1: M/m, D/d
II2: m/m, D/Y
III1: M/m, d/Y
III2: M/m, D/Y
IV1: M/m, D/YoM/M,D/Y
IV2: m/m, D/D
d)L’individuIV1ésheterozigotperalgendeladistròfia;senseaquestadada nohihaviamaneradesabersieraheterozigotohomozigotperal’al·lelnormal.
e)Escriuretotselsgenotipsensajudaràaobtenirlaresposta.Elgenotipdel pareés M/m, D/Y.Pertant,donaràllocaquatremenesdegàmetes: M, D; m, D; M, Y; m, Y.Elgenotipdelamareés M/m, D/d ilaconstitució genèticadelsseusòvulstambéésdequatretipusdiferents: M, D; M, d; m, D; m,d.Enconseqüència,lahipotèticadescendènciadelaparellaserà ladelquadresegüent:
Leslàminesd’Ishiharaconstitueixenel testmésconegutperdiagnosticarel daltonisme.Alalàminadelail·lustració unapersonaambvisiónormalperals colorshipotreconèixerelnúmero26.
M,D m,D m,Y
M/M,D/D
M/m,D/D
M,Y
M/M,D/Y
M/m,D/Y
M/M,d/D
M/m,d/D
M/M,d/Y
M/m,d/Y
M/m,D/D
m/m,D/D
M/m,D/Y
m/m,D/Y
M/m,D/d
m/m,D/d
M/m,d/Y
m/m,d/Y
Enresum,delesfilles3/4seransanes(noafectadesniperdistròfianiper daltonisme)i1/4serandistròfiquesperòambvisiónormal;capnopotser daltoniana.Encanvi,entreelsfillsmascles,3/8seransans(noafectatsniper distròfianiperdaltonisme),3/8serandaltonians(sensedistròfia),1/8seran distròfics(perònodaltonians)i1/8serandistròficsidaltoniansalhora.
Mortsabans dels28dies
Encaravius alcapde28dies
Nombredenounats(aescalalogarítmica)
0-1,01,1-1,71,8-2,72,8-3,63,7-4,54,6
Pesenquilograms
12.1. Elgràficmostraelresultatd’unestudi científicfetenunhospitaldeLondressobre elpesde14000nounats.Lesbarresdelgràficindiquenelsnadonsquehaviensobreviscutalcapde28dies(encolorverd)iels quehavienmortalcapdels28dies(en colorblau).Delainterpretaciód’aquestes dades,esdesprènqueelpesdelsnounatsés unfactordeselecciónatural.
Estudiaelgràficiresollesqüestions següents:
a)Quinspesostendeixenasereliminats perlaselecciónatural?Perquinescauses? Sónlesmateixesentotselscasos?Raona laresposta.
b)Quinspesosdelsnounatssónafavoritsperlaselecciónatural?
c)Dibuixa,demanerasimilaraaquest,l’histogramadepesosdels nounatsquecontribuiranambelsseusgensalageneraciósegüent.
d)Elpesdelsnounatsésuncaràcterqueenbonaparts’hereta; enconseqüència,comtendiràaevolucionarenelfuturelpesdels nounats?
e)Elcasdel’hospitaldeLondres,ésespecialodeusermésaviat igualatotarreu?
12.2. Enl’èpocadeDarwin,elbisbeUssher,queinterpretavacada parauladelaBíbliacomunaveritatabsoluta,vaarribaralaconclusió–desprésdellargscàlculsiespeculacions–queladatarealdelacreaciódelmónhaviaestatales9delmatídeldiumenge23d’octubre del’any4004aC.LlegeixeltextdeLamarckquehihaenlapàgina362,enquèexpressalessevesideessobrel’antiguitatdelséssers vius,iexplicaperquès’acostumaadirqueLamarckiDarwin«van introduirenlaconsideraciódelséssersviuslanociódeltemps».
12.3. Defineixelterme eficàciabiològica. Dequèdepèn?
12.4. Repassal’herènciadelsgrupssanguinisAB0iRhidiguesquins podenserelsgenotipsdelsprogenitorsdelsindividussegüents,sense capparentiuentreells:
a)IndividudefenotipABiRhpositiu.
b)Individudefenotip0iRhnegatiu.
c)Individudefenotip0iRhpositiu. Suposaaquestesduespossibilitats:
a)Queenundeterminatambientelfenotip0té,peralgunaraó, menyseficàciabiològicaqueA,BiAB.
b)QueelfenotipRhpositiuresultadesafavoritrespectedelfenotipRhnegatiu.
Suposantqueelcoeficientdeselecciófoselmateixenelsdoscasos, quinprocésdeseleccióresultariaméseficaç(perreduirlafreqüència delgenenqüestió)?
12.5. LlegeixaquestafrasedeFrançoisJacob:«Elquesepararadicalmentl’evolucionismedeDarwinideWallacedetotelpensament anteriorésl’aplicacióalséssersviusdelanociódecontingència». Comenta-laidiguesquèsignificaatorgarlaqualitatdelacontingènciaalséssersvius.
12.6. Raonasiésprobable,osimésnoplausible,ques’esdevinguin aquestsfets:a)quelesbalenestorninadesenvoluparlespotesposteriors;b)queunaespèciedetalpd’ullsatrofiatsquearaportaunavida nodeltothipogearecuperilavista;c)quelamateixaespèciedetalp deixid’usarlespotesdavanteresperexcavarilesfaciservirpercórrer; d)queduessargantanesquehabitenenarxipèlagsdiferentsillunyans acabinassemblant-secomduesgotesd’aigua.
12.7. Enlespoblacionseuropeeshihaunalbípercada20000individus.Calculaquantsheterozigotshihaenaquestespoblacions.
12.8. SiescompleixlalleideHardy-Weinberg,lesfreqüènciesgèniquespodencalcular-sefàcilmentapartirdelesgenotípiquestambéen elcasdel’al·lelomorfismemúltiple.Així,sipelquefaalsistemaAB0 anomenem p,q i r lesfreqüènciesdelsgens IA,IB i i,respectivament, tenimquelesfreqüènciesdelsdiferentsgenotipscorrespondranaldesenvolupamentde(p + q + r)2.Unamostraàmpliad’unadeterminadapoblacióhadonataquestesfreqüències:48,88%(grupA),8,54% (grupB),2,87%(grupAB)i39,71%(grup0).Calculalesfreqüènciesgèniques p,q i r.
12.9. Calculalavariaciódelesfreqüènciesgèniquesdesprésd’una generaciódeseleccióenunapoblacióenquè q =0,9enelscasos següents:a)elcoeficientdeseleccióés s =0,3ilaseleccióésafavor deldominant;b)elcoeficientéselmateixqueenelcasanterior,però laseleccióésafavordelrecessiu;c)elsmateixoscasos a)i b),peròara p=q =0,5.
12.10. Unramaderd’ovítéenelseuramatun50%d’animalsde constituciódèbil,quelisuposenunagreupèrduaperquènoenpot treurecapprofit.Semblaquelamalaltiaésproduïdaperungencompletamentrecessiu.Sieliminaaquestsindividus,quantempsnecessitaràperreduirlespèrduesal5%,al2,5%,al’1%ial’1‰?
ElsistemasanguiniAB0constitueixun polimorfismemoleculardebasegenètica. Tresal·lels IA , IB i i, codominantselsdos primersirecessiueltercer,determinen l’existènciadequatregrupssanguinis:A (genotips IAIB i IAi),B(genotips IBIB i IBi), AB(genotip I A I B )i0(genotip ii ).La diferènciabioquímicaentreelsunsiels altresrauenlanaturalesadel’antigende superfíciedelsglòbulsvermells.Enelgrup sanguiniAhiseràpresentl’antigenA;en elgrupB,l’antigenB;enelgrupAB,els antígensAiBalhora,ienelcasdeles personesdelgrupsanguini0nohihaurà capantigen.
Extensiódesangvistaatravésdel microscopiòptic.
12.11. Siesvolguésimpedirqueesreproduïssin,posempercas,els individusalbinsd’unapoblació,quantesgeneracionsiquantsanys(a raóde30anyspergeneració)caldrienperreduirlafreqüènciad’albinsalameitat?
12.12. Permitjàd’estudisdecamp,l’ornitòleg DavidLackvaintentarcomprovarsihihavia algunarelacióentrelamidadelapostadels estornells(nombred’ousd’unaposta)ilaseva capacitatdesupervivència.Perfer-ho,va comptarelspolletsquehihaviaencadaniu quevatrobarielsvaanellarunperun.Alcap detresmesos,vacapturartotselsestornells jovesquevapoder,ielsresultatsconstenenla tauladesota.
EstudiaelsresultatsquevaobtenirDavidLackicontestaales preguntessegüents:
a)Quèindiquenaquestsresultats?
b)Representaenundiagramadebarreselnombredeniuadesde cadaclassequevaestudiarDavidLack.
c)Sihihaunaniuadaòptima,dequantspolletsés?
d)Lesniuadesgransdeixenpocssuperviventsoendeixenmolts?
e)Perquèsónpocfreqüentslesniuadesgrans?
f)Quinscreusquesónelsmotiusqueexpliquenlesrespostesa lespreguntes d)i e)?
g)Quinssónelsagentsofactorsdelaseleccióqueoperenafavor d’aquestadeterminadaniuadaòptima?
h)Comentadequinamaneraelcomponentgenèticielcomponentambientalpodenafectarelnombredepollets.
12.13. Elbacteri Escherichiacoli éssensibleal’antibiòticestreptomicina,queeldestrueix(peraquestmotiuespotusarpereliminarel microbi).Tanmateix,algunesmutacionsdelseuADNliconfereixen resistènciaal’estreptomicina,quealeshoresesdevéineficaçpercombatreelbacteri.
Ungrupd’investigadorsvanferl’experimentsegüent:vancultivar Escherichiacoli enunmedidecultiusenseestreptomicinaial capd’uneshoresvanferunrecomptequevadonarelsresultats indicatsenlaprimerataula.Totseguitvanprendre2mldelmedi anteriorivanposar1mlenunmediambestreptomicinai1ml enunmedisenseestreptomicina.Passades48hores,vancomptar novamentelsbacterisivanobtenirelsresultatsques’indiquen,respectivament,enlasegonataulaienlatercerataula.
Taula1.Medidecultiuinicialsenseestreptomicina
Nombredebacterispresents
Sensiblesal’estreptomicinaResistentsal’estreptomicina
500milions
16milions
Taula2.Medidecultiuambestreptomicina
Sensiblesal’estreptomicina
Nombredebacterispresents 0
Resistentsal’estreptomicina
620milions
Taula3.Medidecultiusenseestreptomicina
Nombredebacterispresents
Sensiblesal’estreptomicina
570milions
Resistentsal’estreptomicina
23milions
Analitzaelsresultatsdelestaulesanteriorsicontestaalespreguntessegüents:
a)Quèsónlesmutacions?Coms’originen?
b)Explicalesdiferentsconseqüènciesquetindràunamutacióen unorganismesegonselseutipusdereproduccióhabitual.
c)Suggereixunaexplicaciómolecularalfetqueunamutaciópugui conferirresistènciaaunantibiòtic.
d)Aquestamenademutacionss’havieninterpretat,enelpassat, comunaconseqüènciadelanecessitatdesobreviure.Quinaseria l’explicació«lamarckiana»delfenomen?
Antibiòtics
Elsantibiòticssónsubstànciesque, quansónpresentsenquantitatsmolt petites,inhibeixenelcreixementdels microorganismes.Elsprimersantibiòticsqueesvanconèixer,començant perlapenicil·linaol’estreptomicina, erenproduïtspermicroorganismes (lafloridura Penicillium ielbacteri Streptococcus enelscasosesmentats). Elsantibiòticssónd’unagranutilitat enmedicina,peròelseuabúsielseu malúsafavoreixenl’apariciódebacterisresistents.
a)Facetesd’ullcompostdepapallona vistesatravésdelmicroscopielectrònic derastreig.
b)Fullesdefalgueraalatardor.
a
e)Contràriament,avuidiasesapquelesmutacions,ilesque confereixenresistènciatambé,apareixenespontàniamentidesprés sónafavoridesperlaselecciónatural.Quinaseria,doncs,l’explicacióneodarwinista?
f)Explicaperquèl’abúsielmalúsdelsantibiòticsafavoreixeneldesenvolupamentdebacterisresistentsalsantibiòtics.Raonalarespostaidiguesquinesconseqüènciesclíniquesgreuspot teniraquestfet.
12.14. Unaexposiciósobrelaformail·lustrava lesrelacionsentrelaformailafuncióenels éssersvius:
«Elsegmentsitua,connecta,aguanta…;l’anglepenetra,apunta,punxa…;elcerclegenera, rodeja,defensa,minimitzaladissipació…;l’hexàgonpavimenta;l’espiralempaqueta;l’hèlix amarra,ancora,guarda;elfractalompleiaccedeixambcontinuïtatalsdiferentspuntsdel’espai.»
Posaalgunexempledetotesaquestesformes (unorganisme,unòrganounapartd’unorganisme)isuggereix-neunahipotèticaexplicació basadaenlaselecciónatural.
12.15. Suposaqueunapoblacióinsularmolt petitad’iguanesésformadanomésperdeuindividus.Elgen A,quedeterminaquelesextremitatsnosiguinpalmades,ésdominantsobre a, que determinaquesíquehosiguin.Delesdeuiguanes,tressón AA, duessónheterozigòtiquesicinc són aa. Tenintencompteaquestespremisses, contestaalespreguntesquehihaacontinuació:
a)Quinessónlesfreqüènciesdelsal·lels A i a enaquestapoblació?
Suposaque,acausad’unincendi,morentres iguanesd’aquestapoblació,totes,peratzar,degenotip AA.
b)Quinéselmecanismeevolutiuquehaactuat?Isilamort,pel foc,delestresiguanes AA haguésestatdegudaalfetqueerenmés lentes(inopasal’atzar),quinseriaelmecanismeevolutiuenaquest cas?
c)Quinesseranlesfreqüènciesgèniquesdesprésdelamortde lestresiguanes?
d)Suposaque,unsanysdesprés,toteslesiguanesdelanostra illatenenlespotespalmades.Suggereixunmecanismeevolutiuque permetiexplicaraquestfet.
L’any1833,eldestacatembriòlegestoniKarlE.vonBaerescriviael textsegüent:
L’observaciódelséssersviusquecomponenactualmentelmónviventensensenyaqueelsindividussóntransitorisidesapareixen,mentrequelesespècies sobreviuen[…].Arabé,observacionsbasadesenlapaleontologiaensporten alaconviccióquel’espècietampocnoéseterna:apareixenundeterminat momentdelahistòriadelmóniméstarddesapareix.Peròsilesespèciesvan morint,quèhicontinua?Noseràelveritablemisteridel’existència,lahistòriadelesespècies?
Unsanysméstard,inopaspercasualitat,CharlesR.Darwinva escollircomatítolperalasevaobracabdalprecisamentellema L’origendelesespècies. Iésque,efectivament,elsmecanismesevolutius portenlespoblacionsal’adaptació–o,encascontrari,al’extinció–i, eventualment,al’especiacióoformaciódenovesespècies.Lesespècies,doncs,s’originen,evolucionenis’extingeixen.Lesespèciesactuals representennomésunpetittantpercentdelesquehanexistit.
S’enténper especiació elprocés,gairebésempregradual–llevatde l’especiacióquànticaperpoliploïdia–,permitjàdelquals’originen novesespèciesapartirdepoblacionsaïllades.Simésnoenteoria,l’especiaciópotser al·lopàtrica,quanlespoblacionsoriginàriesquedivergeixenhabitenàreesdiferents,i simpàtrica, silespoblacionsdivergentscomparteixenterritori.
Quanesconsideraelfenomende l’especiacióaescalaglobal,s’observalarepeticiód’unasèriedepatrons.Hiha divergència quanels diferentsllinatgesseseparenievolucionen,enambientsdiferents,cap aunincrementdelesdiferències morfològiques.Ladivergènciatambépotdonar-sequandosllinatges desenvolupensolucionsdiferents perresoldreunmateixproblema.Hi ha convergència, encanvi,quan dosllinatgesevolucionencapauna similitudmorfològica,sovintcoma conseqüènciadelapressiódeseleccióperadaptar-seaambientso problemessimilars.Mentrequela divergènciapotportaròrganshomòlegsadiferenciar-secadacop més,laconvergènciaabocasovint alasimilitudd’òrgansanàlegs. S’anomena radiacióadaptativa la ramificacióoproliferació,apartir d’unalíniaprimitiva,detotdeformesespecífiquesperocupariexplotarelsdiferentsrègimsonínxols ecològicsdisponiblesenunespai.La radiacióadaptativaimplicaunacapacitatespecialperpartdelacompetènciaperocuparelsdiversosnínxols ol’absènciadecompetidorsprevis. Quandosllinatgescanviendeforma similardavantelsesdevenimentsambientals,esparlad’evolucióparallela.
Per evolucióiterativa s’enténl’apariciómésd’uncopdeformesmorfològicamentsimilarsapartird’unmateixllinatgeevolutiu.
L’aïllamentgeogràficmitjançantbarreres físiques(unaserralada,unbraçdemar, etc.)téunagranimportànciaperal procésd’especiació.
Elsmulssónhíbridsestèrils,incapaços deprocrear.Constitueixenunabarrera queseparaduesespèciesbiològiques: cavallsiases.
L’estudidelsmecanismesd’especiacióparteixdelfetquelesespèciessónformadesperdiversespoblacionsounitatsevolutives.D’acordambelsfonamentsdel neodarwinisme, elconceptebiològicdefineixl’espècie comunconjuntd’individusquetenenencomúunessemblances morfològiquesifisiològiques(perbéque, sovint,ambdimorfismesexual)quecomparteixenambelsseusantecessorsique sóncapaçosdereproduir-seentresiid’originardescendènciaviableifèrtil.
Estractad’unconcepteaplicablenomés alsorganismesambreproducciósexualique posal’èmfasienlesduescaresd’unmateix fet:a)lapossibilitatquetotselsindividus d’unamateixaespèciepuguinreproduir-se entreells(simésnoenteoria,perquèla distància,perexemple,potconvertiraquestapossibilitatenpocmés queunaentelèquia);b)laincapacitatd’hibridacióentreindividusd’espèciesdiferents(depoblacionspertanyentsaespèciesdiferents).Vist desd’aquestaperspectiva,elmul–estèril–ésunabarreraentredues espècies(aseicavall).
Demaneraquequan,desprésdedivergirmésimés,arribael momentenquèelsindividusdelesdiversespoblacionsjanoes podenencreuar(idonardescendènciafèrtil),ésperquèhanaparegutnovesespècies.Comqueelprocésésgradual,avegadesesdonen situacionscurioses,comaraelsanellsderacesenquèl’encreuament noesdónaalanatura,però,defet,encaraéspossible.
TortugagegantdelesillesGalápagos. Potarribarafergairebédosmetresde longitud.
LesGalápagosielspinsansdeDarwin
L’arxipèlagoceànicdelesGalápagos,queté unasuperfícietotald’uns8000km2,ésformatpernombrososillotsiunparelldedesenesd’illesd’origenvolcànicrecent(amb unaantiguitatd’1a10milionsd’anyssegons l’illa).Distagairebéunmilerdequilòmetres delescostesmésproperes,lesdel’Equador.
L’arxipèlagnovaserdescobertfinsalsegle XVI,fetquen’explicalaconservació.Quan, aborddel Beagle,CharlesR.Darwinelva visitar,jaestavahabitat,sibéescassament,i
tambéeravisitatregularmentpelsbaleners. Lafaunailaflorainsularslivancridar moltl’atenció,finsalpuntqueaquellavisitaliresultariaclauperalaconcreciódela teoriadel’evolucióperselecciónaturalil’origendelesespèciesquelirondavapelcap. «Aquí–vaescriureenelseudiari–tenimla sensaciódeserunamicamésapropd’aquest granesdeveniment–aquestmisteridemisteris–queésl’apariciódenousésserssobrela terra.»
Elpinsàterrósgrostéun becgros,fort,triturador… comuntrencanousgros.
Aquestpinsàgrandelsarbres téunbecgrosiesmolatper mossegarfortitallar…com lestisoresdetallarmetall.
Elpinsàcantairetéunbec petitipunxegutperburxar dinslesescletxes…com unespinces.
LaflorailafaunadelesGalápagossón moltsingulars,ambmoltsendemismes.Les espèciesquehisónpresentsderivendelesformesultramarinesqueaconseguirend’arribarhi.Abandadelesterrestres,hihaiguanes marines,l’únicsaurimarídelmón,amb adaptacionsbenparticulars(glàndulesnasals queeliminenl’excésdesalicuacomprimida lateralment,queusenpernedar);tortugues gegants–d’onveelnomdel’arxipèlag–, algunesdemésde200kgdepes,iunagrandiversitatd’espèciesestranyes d’ocells.
Elpinsàterróspetittéunbecpetitperò fort,triturador…comunpetittrencanous.
Elpinsàdelscactustéunbecllargidur perburxar…comunesalicatesprimes.
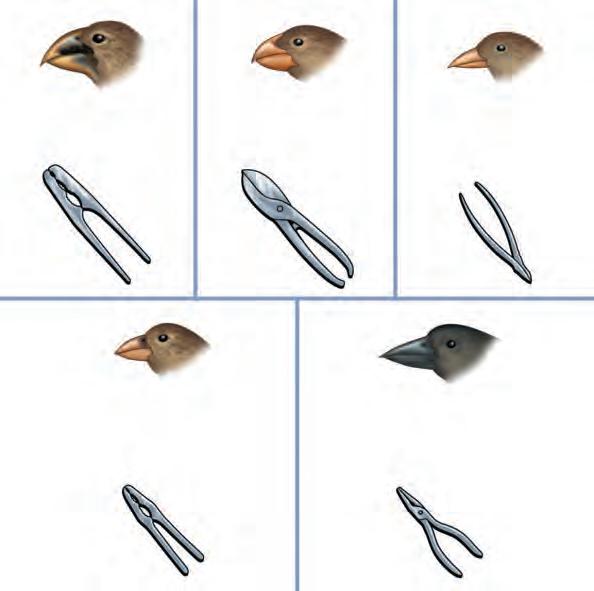
Darwinobservàquemoltsorganismesdiferiend’unaillaal’altra(malgratqueestanseparadesperdistànciessovintnosuperiorsals80o100km). Elvicegovernadordel’arxipèlaglivaexplicarquen’hihaviaproudedonar uncopd’ullalacloscad’unatortuga–queellielsbalenersconsumienamb fruïció–persaberdequinaillal’havienportat.PeròDarwinanàmésenllà idescobríqueentreelsocellsdelgrupdelspinsansencarahihaviamésdiversitat.Adiferènciadelsdelcontinent,els pinsansdelesGalápagos són(malgratlagrandàriasimilar)mésdiversos:hihamésformes(13espècies,amb subgrupsdiferenciats)itenendiferènciesmoltnotablespelquefaal’hàbitat (terrícoles,arborícoles…),alrègimalimentari(insectívors,granívors…)ia laformaigrandàriadelbec,caràctersrelacionatsentresi.
Anysméstard,mentreafinavaelseupensamentevolucionista,Darwin comprenguéquel’aïllamenthaviaportatelspinsansdelesGalápagos–descendentsdelsquehihavienarribatdesdelcontinent–aunagran radiació adaptativa,ésadir,aunadiversificaciódelaformaidelaconductaque elspermetéocuparhàbitatsquenoocupavenalesterrescontinentals,on aquellsnínxolsestavenhabitatsperaltresespècies.
Lesrepetidescaceresilaintroducciódelsanimalsdomèsticsvanocasionarl’extinció–durantelssegles XIX i XX–d’algunesdelesformesinsulars. Perexemple:deles15subespèciesdetortuguesquehihaviaentempsde Darwin,quatres’hanextingitiunacinquenaestàapuntdefer-ho.Actualment,lesGalápagostenenunestatusespecialdeprotecció:constitueixenun parcnacionalequatoriài,desde1979,hanestatdeclaradespatrimonide lahumanitat.
AlesGalápagos,elspinsansnotenen tantacompetènciacomenaltresindrets. Enconseqüència,hivanexperimentar unaradiacióadaptativa,ésadir,una especialitzacióiunadiversificació,com ladelaformadelbec,queelsportà aocuparunadiversitatdenínxols. Aquestesdiversesformesdelbecels permetobtenirdiferentstipusd’aliment.
5.2.Barreresgeogràfiquesiespeciacióal·lopàtrica
Alesillesoperadelamaneramésevidentundelsfactorsprincipals d’especiació:l’aïllamentgeogràfic,ésadir,lafragmentaciódeles poblacionsnaturalsensubgrupsseparats,elsquals–mancatsdecontacte–podeniniciarcaminsdivergents. Amés,noéspasinfreqüentqueles poblacionsinsulars–tenintencompte comhiarribenelsseusprimersrepresentants–s’origininapartirdepocs individus,demaneraqueladerivagenètica–quenofasinóaccentuarles divergències–hisolserunfactorevolutiudeprimerordre.
PlatjadeBudir,alapenínsulade Snaefellnes(Islàndia).
Les barreresgeogràfiques frenen l’expansiódelespoblacionsicompartimentenlessevesàreesdedistribució enterritorisque,funcionalment,es comportencomailles.Unabarrera geogràficapotserunocèa,unbraçde marounaserraladaperaunaespèciedelpla,peròtambéhopotser elterrenyplaquehihamésenllàdelscimsenelcasdelesespècies alpines,ounistmeenelcasdelesmarines,etc.
Quanduesoméspoblacionsd’unamateixaespèciequedenseparadesperunabarrera,estrobensotmesesaambientsdiferents,sovint moltdiversos,demaneraquelaselecciónaturalilarestadelsmecanismesevolutiushiactuendeformadiferent.Aixòfaqueambeltemps s’originiunadiversificaciógenèticanotableentrelespoblacionsseparades.
Quanladiversificacióésprouimportantperimpedirl’encreuament delsindividusd’aquestespoblacionsseparadesencasqueestrobin (espontàniamentoartificialment),esdiuquecadascunad’aquestes poblacionsconstitueixjaunaespèciediferent.
Repelnomde mecanismed’aïllament qualsevolpropietatqueimpedeixiqueduesespècies,odosgrupsdepoblació,s’encreuinodonin híbridsviablesifèrtils.Elsbiòlegsevolucionisteshandiscutitllargamentsobresialtresmecanismesd’aïllament–diferentsdelgeogràfic–podensercausad’especiació.Elsméspuristesconsiderenqueno,i argumentenambunacertasubtilesaquepertalqueespuguidonar unaltreaïllamenthihad’haver,enprimerlloc,unaïllamentgeogràficquel’afavoreixi.Iafegeixenque,dequalsevolmanera,senseaïllamentgeogràficnoseriapossibleladiferenciaciógenèticadelespoblacionsencursdeseparació,peròencaranoseparadesdeltot.
Elcertés,però,ques’hanestudiatnombrososexemplesd’aïllament percausesecològiques,deconductaod’unaaltraíndole.Unaclassificaciód’aquestsmecanismespermetdistingir-nededuesclasses: prezigòtics i postzigòtics ,segonsqueimpedeixin–elsprimers–laformaciódezigotshíbrids,oredueixin–enelcasdelspostzigòtics–la viabilitatolafertilitatdelshíbrids.
Enelcasd’espèciesqueocupenunaàrea geogràficamoltextensa,potpassarque lesdiferènciesentrelesformesgeogràficamentextremesfacinquel’intercanvigenèticentreindividusd’un extremidel’altresiguigairebénul,per mésqueteòricamentpossible.Aquestés elcasdelesgavinesdelcerclepolaràrtic ilesdel’AtlànticNord,quehiformen un anellderaces.
Elgaviàargentatielgaviàfoscsónlesduesformesextremesd’aquestanell circumpolarderacesdegaviansdelescostesnòrdiques(queenlasevaprogressivaexpansióalllargdelsparal·lelsseptentrionalshanarribataretrobarsedesprésd’haverevolucionatcadacopmésseparadament).Totiquesón interfèrtils,l’intercanvidegensentrelesduesracesésgairebénulperquèno hihaapenesencreuamentsentrelesduespoblacions.
Laraóésdecomportament,iaquestfethaestatobjected’apassionants estudisetològics.S’hiesdevéunaïllamentanomenat etològic,perquèla femellanoreconeixelmascledel’«altra»espècie,principalmentperqüestionsdemorfologiaidecoloraciódelcap(l’ull,lanineta,etc.).Quan, experimentalment,s’hamodificat–ambpintura,perexemple–l’aspectedel mascleperfer-losimilaraldel’altre grup,laparadanupcialhacontinuat senseinterrupciófinsalacòpula,i d’aquestahannascutelspolletscorresponents.
Ésl’aïllamentdeconducteselque haabocatalaseparaciódelsgens d’ambduespoblacions,perquè,sibé tambééspossible–simésnoenteoria–l’intercanviatravésdelespoblacions queocupenleszonesintermèdies,la intensitatd’aquestamenadeflux(flux gènic)s’endevinamoltreduïda,atesala granextensió(distànciageogràfica) ocupadaperaquestsanimals.
Gaviàargentat, formasiberiana
Colòniadegaviansdel’AtlànticNord.
Anellderacesdelsgaviansdel’Atlàntic Nord.
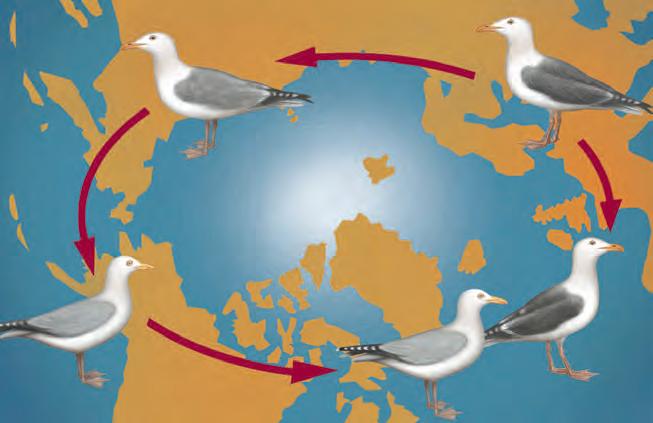
Gaviàargentat, formaamericana
Gaviàfosc, formaescandinava
Gaviàargentat, formabritànica
Gaviàfosc, formabritànica
Elsmecanismesd’aïllamentprezigòtics
Elsprincipalsmecanismesd’aïllamentprezigòticssónl’ecològicod’hàbitat,l’estacionalotemporal,elsexualoetològic,elmecànic,l’aïllamentperpol·linitzadorsdiferentsielgamètic.
S’anomena aïllamentecològic elqueoperaentrepoblacionsque viuenalamateixazonaperòenhàbitatsdiferents;perexemple,dues espèciesdepugonsqueviuensobreplantesdiferents,duespoblacions depeixosqueviuenenaigüesdediferentsalinitat,etc.
L’aïllamentestacional éselqueesprodueixquanduesespècies entrenenzeloarribenal’èpocadelareproducció(delafloració,en lesplantes)endiferentsmomentsdel’any.
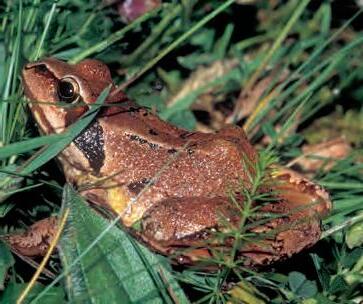
Aquesttipusdemecanisme éselquemantéaïllats,per exemple,dosgrupspoblacionalsdegranotesdelPirineu: eldelagranotaverda(Rana ridibunda)ieldelagranota vermella( Ranatemporaria ). Aquestsdosgrupsesmantenencomaespèciesseparades, malgratquesóninterfèrtils, perquèallàonsesuperposen dinslessevesàreesdedistribució(aiguamollsicorrents d’aiguadelPirineu),elsseus períodesanualsdereproducciódifereixendemaneralleugeraperòsuficient.
Undelscasosmésespectacularsd’aïllamentestacional éseldeduesespèciesdiferents decigalesamericanes.Enels insecteshomòptersd’aquesta mena,lavidalarvàriaéshipogea,ésadir,transcorre–durantanys–sotaterra.Enl’exempleesmentat,laduraciódelsrespectiusperíodes larvarisésde13i17anys(dosnombresprimers).Aquestfetimpedeixqueelsadultsassoleixinlamaduresasexualalmateixtemps,encaraquevisquinalesmateixeszones,demaneraquel’encreuamentno esdónamai.
L’aïllamentsexual o etològic esdónaquan–comenelcasdels gavianscircumpolars–l’atracciómútuaentreelsdiferentssexesésnul·la oinsuficient.
L’aïllamentmecànic éscausatperlamancadecorrespondènciafísicaentreelsgenitals(oentrelespartsflorals)masculinsifemeninsde cadascundelsdosgrups,elsquals,ennoencaixar,impedeixenl’aparellament.
Similarsefectestél’aïllamentperpol·linitzadorsdiferents queexperimentenmoltesplantessuperiors,lesflorsdelesqualssónpol·linitzades perinsectesespecíficsquehandesenvolupatmorfologiesespecífiques ques’adeqüenal’anatomiadelesflors.
Finalment,esdiuquehiha aïllamentgamètic quanelsgàmetes masculinsifemeninsnos’atrauen,sovintperquèelsespermatozoides d’ungrupsóninviablesoesdevenenimmòbilsenelsconductessexuals (o,enelcasdelesplantes,enelsestils)d’unaltre.Aixòésespecialmentimportantenelsanimalsmarins.
Elsmecanismesd’aïllamentpostzigòticsactuenquan,malgratlainexistènciad’unabarreraproufortaperimpedirl’aparellament,d’aquest aparellamentnoesderivalaplenahibridació.Sesolendistingirtres tipusdecauses:
–Perquèels híbridssóninviables (sovintperquèladiferentdotaciócromosòmicadificultalareparticiódelmaterialgenèticifainviable,desdefasesprimerenques,ladivisiódelzigot,elqualinvolucionaràpidament).
–Perquè,malgratqueelzigotesdesenvolupa,els híbridsresultantssónestèrils o,simésno,hosónelsd’unsexe.
–Perquè,endarrerterme,encaraquelesduescausesanteriorssiguin superades,esprodueixla degeneraciódelshíbrids ,tantdelesgeneracionssuccessivescomdelsencreuamentsretrògrads,afectatsdereduccionsseveresdelasevaviabilitatofertilitat.Enpoquesgeneracions s’extingeixqualsevoldescendènciahíbrida.
Papallona(borinot)delafamíliadels esfíngids,concretament Agriusconvolvuli, amblallargaespiritrompaquela caracteritza.
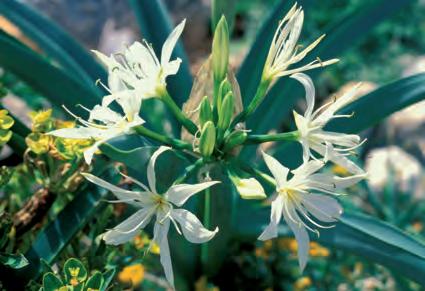
Lliriblancdemarina Pancratium maritimum, lesllarguescorol·lesdelqual sónpol·linitzadesperinsectescomla papallona Agriusconvolvuli.
Lameiosisoltenirlloceneltranscurs delaformaciódelsgàmetes.Els cromosomes,desprésd’intercanviar-se fragmentsdecromàtides,esreparteixen entrelescèl·lulesfilles.
Principalsterminacionsdelescategoriestaxonòmiquesenbotànica
Divisió: - fits ( phyta ,enllatí).
Exemple:espermatòfits.
Classe: - micets ( mycetes ,enllatí).
Exemple:ascomicets. - ates ( atae ,enllatí).
Exemple:briates. - fícies ( phyceae ,enllatí).
Exemple:clorofícies.
Ordre: - als ( ales ,enllatí).
Exemple:rosals.
Família: - àcies ( aceae ,enllatí)
Exemple:rosàcies.
Del’intentd’ordenarelsmilionsd’espèciesbiològiquesexistentssorgeixla sistemàtica,unabrancadelabiologiaqueestudialaclassificaciódelséssersviusendiferentscategoriesotàxons.Lasistemàtica moderna–talcommostràDarwinapartirde L’origendelesespècies–buscareflectirla filogènia,ésadir,lesrelacionsevolutivesdelséssers vius,osia,lasevacomunitatdedescendència.
Lasistemàticaésauxiliadaperla taxonomia ,queestableixlescategoriestaxonòmiquesmésadequadesencadacasperencabirladiversitatd’espèciesd’undeterminatgrupd’organismes.Perfer-ho,es basanosolamentenlessimilitudsmorfològiques,sinóenanàlisisembriològiques,fisiològiques,ecològiques,etc.Lesprincipals categoriestaxonòmiques o tàxons són–demésamenysabast–el regne ,el fílum ( tipus o divisió ),la classe ,l’ ordre ,la família ,el gènere il’ espècie .Tambés’utilitzencategoriesintermèdies,sovint designadesambelsprefixos sub- i super- ;perexemple,subgènereo superclasse.Persotadel’espèciesesolendistingircategoriessubespecífiques:la subespècie ,la varietat ila raça .Avegades,elsnoms d’unadeterminadacategoriaacostumenacompartirunsufixcomú; perexemple,lesfamílieszoològiquesacabenen -ids (homínids,cànids, papiliònids…).
Tàxonsdinselregneanimalalsquals pertanyenelllopil’ésserhumà.
D’acordamblavisióneodarwinistaclàssica,lesespèciesbiològiques tenenunaexistènciareal;encanvi,lesaltrescategoriestaxonòmiques sónartefactesculturalsqueensaproximen,enlamesuraquehanestat bentraçades,alahistòriaevolutivadelséssersvius.
Regne:animals
Fílum:cordats
Superclasse:vertebrats
Classe:mamífers
Subclasse:euteris
Ordre:carnívors
Família:cànids
Gènere: Canis
Espècie: Canislupus (llop)
Ordre:primats
Família:homínids
Gènere: Homo
Espècie: Homosapiens (ésserhumà)
Recentment,però,una interpretaciócladísticadelataxonomia qüestionaelvalorobjectiudel’espècie,ja queconsideraque«ladefiniciód’espèciedescansasobreunanecessitatde nomenclaturainosobreunarealitat biològica».Enaquestcas,caldriareplantejartotelsistemadeclassificació.Elcertésque–iésd’aquíque sorgeixenmoltsdelsproblemes–,malgratelrigorteòricapuntatmésamunt, moltesespèciessóndescritesapartir delescaracterístiquesd’unespècimen tipus–oholotip–dipositatenunmuseu,sensetenirencomptelabiologia delespoblacions.
Laveritableclassificacióésgenealògica
Elsnaturalistesprocurenordenarlesespècies,elsgèneresilesfamíliesdintrede cadaclassesegonselqueesdiuun sistemanatural.Però,quèéselqueesvol dirambaquestterme?Algunsautorshoconsiderensimplementunesquemaper ordenarelconjuntdelséssersviventsquesónméssemblantsiseparar-losdelsque sónmésdiferents.[…]Moltsaltresnaturalistespensenqueambl’expressió sistemanatural esvoldiralgunacosamés:creuenquerevelaelpladelcreador, però[…]emsemblaqueaixínos’afegeixresalnostreconeixement[…].Crec quelacomunitatdedescendència–únicacausaconegudadesemblançaestreta entreelséssersorgànics–éselvinclequeensésrevelat–enpart–perlesnostres classificacions.Toteslesregles,ajudesidificultatsenlaclassificacióespoden explicar,simoltnom’enganyo,d’acordamblateoriaqueelsistemanaturales basaenladescendènciaambmodificació;queelscaràctersqueelsnaturalistes considerencomademostratiusd’afinitatvertaderaentreduesespèciesoméssón elsquehanestatheretatsd’unavantpassatcomú,jaquetotaclassificacióvertaderaésgenealògica.Lacomunitatdedescendènciaéselvincleocultqueelsnaturalisteshanestatbuscantinconscientment,inopasunpladesconegutdecreacióol’enunciatdeproposicionsgenerals,nielmerfetdeposarobjectesméso menyssemblantsjuntsoseparats.
CHARLES R.DARWIN, L’origendelesespècies (1859)
6.2.Lanomenclaturabinomial
Desdelsegle XVIII,perdesignarlesespèciesbiològiquess’usaladenominada nomenclaturabinomial,queintroduíel botànicsuecKarlvonLinné(1707-1778). Acadaespècieseliassignaunnomllatinitzat–el nomcientífic–,formatper duesparts:unadegenèricaiunad’específica.Laprimera,o nomgenèric (escritaenmajúscula),éscompartidaper toteslesespèciesproperes(siexisteixen) queesclassifiquenenelmateixgènere. Encanvi,lasegonapart–enminúscula–ésexclusivadecadaespècie.
Així,perexemple, Homosapiens,Canis lupus,Delichonurbica,Hirundorustica i Hirundorupestris sónelsnomscientífics del’ésserhumà,elllop,l’orenetacuablanca,l’orenetacomunail’orenetadelespenyesoroquerol,respectivament.Aquestes
Paisatgedelataigàalaprovíncia canadencad’Alberta.
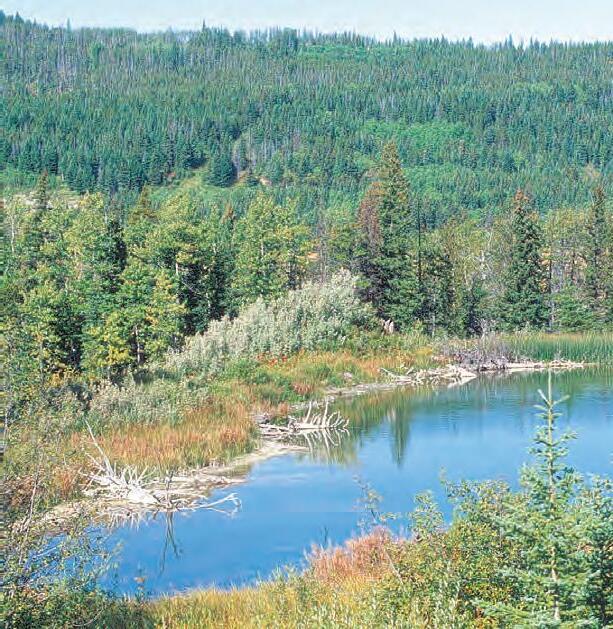
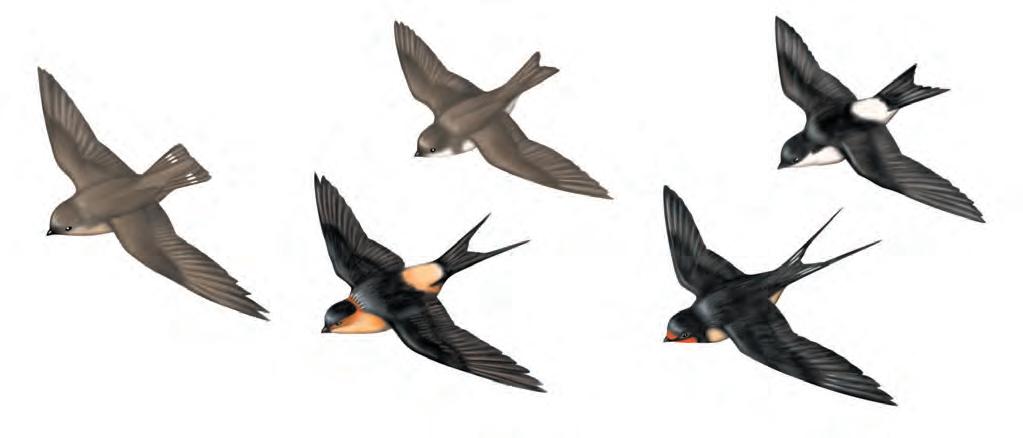
Lescincespèciesd’orenetespresentsala penínsulaIbèrica.
duesespèciesdarreressóntanproperesentresiqueesclassifiquendins elmateixgènere(Hirundo).
Elsnomscientíficspodensemblarcomplicats,peròtenenelgran avantatgequepodenserentesosperqualsevolpersona,siguiquina siguilasevallengua.Ésunaspecteprouimportant,sitenimencompteelsmilersimilersd’espèciesexistentsielsnombrosíssimssinònims quehihapelquefaalsnomspopularsdelsorganismes.Elsnoms científics,però,nosubstitueixenelsnomspopulars,jaqueaquests, dinsdecadacultura,testimonienlasaviesa,laperspicàciailacapacitatd’observaciódelsnostresavantpassats.
12.16. Raonalaversemblançadel’afirmaciósegüent:«L’especiació implicaaïllamentgeogràfic».
12.17. Uninvestigadorvaencreuarlesmosquesdelvinagre Drosophilamelanogaster,Drosophilasimulans i Drosophilamauritiana ambels resultatssegüents:
Encreuament
Descendència
D.melanogaster × D.simulans Només ,estèrils
D.simulans × D.mauritiana fèrtils, estèrils
D.melanogaster × D.mauritiana Només ,estèrils
a)Lesmosques Drosophilamelanogaster,D.simulans i D.mauritiana, formenunasolaespècieoenformentresdediferents?Perquè?
b)Quintipusd’aïllamentreproductorhihasdescobert?
12.18. EnunmateixindretdeCalifòrniaviuenelspins Pinusradiata i P.muricata. Elprimerprodueixpol·leniesreprodueixafinalsde l’hivern;elsegonhofaentradalaprimavera,quanelperíodereproductorde P.radiata faunesquantessetmanesquehaacabat.Digues siespotconsiderarque Pinusradiata i P.muricata sónunaodues espèciesiperquè.Quintipusd’aïllamentoperaenaquestcas?
12.19. Lesorenetesformenpartdelafamíliazoològicadelshirundínids.Fesaquestesactivitats:
a)Diguesaquinordre,classeifílumpertanyen.Escriu-nelafitxasistemàticacompleta.
b)Lesorenetes,sónespèciesmigratòries?Onviuendurantels mesosd’hivern?Ésveritatque«tornen»alllocd’origen?Comho podemsaber,això?
c)Ambl’ajutd’unaguiad’ocells,escriuelsnomscientíficsdeles cincespèciesd’orenetesquehabitenalaMediterràniaoccidental.
d)Informa’tsobrelamorfologia(elcolor,lallargàriadelacua…) ielshàbits(onhabiten,onfanelsniusiquinaformatenen…)de lesdiversesespèciesd’orenetesesmentadesianotalesdiferènciesque etpodenservirperdistingir-les.
e)Explicaquinesconclusionsesderivendelacomparaciódels nomscientífics.
f)Escriuaraelnompopularcatalà,castellà,francèsianglèsde lescincespèciesesmentades(elstrobaràs,probablement,enlamateixafont)icompara’ls.Quinesconclusionsse’nderiven?
g)Raonasielsnomscientíficspresentenavantatgessobreelsnoms popularsisielspodensubstituir.
Orenetescuablanca.
a)Abelladelgènere Scolia. b)Orquídia Ophrysspeculum.
12.20. Llegeixeldocument«LesGalápagosielspinsansdeDarwin», quetrobaràsenlapàgina419,icontestaalespreguntessegüents:
a)Quinamenad’ocellssónelspinsans?N’hiha,aquí?Comsón?
b)QuantesespèciesdepinsansdiferentshihaalesGalápagos?
c)D’onprovenen,elspinsansdelesGalápagos?
d)Quèsignificaque«alesGalápagos,elspinsansvanexperimentarunaradiacióadaptativa»?
e)Posaaltresexemplesderadiacionsadaptativesactualsopassades(fòssils).
f)Perquèelspinsansnocolonitzenalcontinentelsmateixos hàbitatsniocupenelsmateixosnínxolsquealesillesGalápagos?
12.21. Lesflorsdel’orquídia Ophrysspeculum s’assemblenalesfemellesdel’abella Scoliaciliata.
a)Esbrinaquinesadaptacionsanatòmiquestél’orquídiaperafavorirlasevapol·linització.
b)Explicasilasimilitudambeltipusd’abellaesmentatafavoreix d’algunamaneral’orquídia.
c)Argumentasil’origendelesplantesambflorsésanterioro posterioraldelsinsectes.
d)Comésatretelmasclede Scolia capalaflor?Quinescaracterístiquesmorfològiquesdelaplantaiquinssentitsdel’insectehi intervenen?
e)Quèsignificaelterme coevolució?
f)Segonsl’explicacióquehasfet,quinavantatgetreul’insectede totplegat?
g)Suggereixcomespothaverarribatalasituacióactual.
h)Onesperariestrobarmésexemplesdecoevolució,enunecosistemaanticimaduroenund’incipientpropid’unaillavolcànicaacabadadeformar?Perquè?
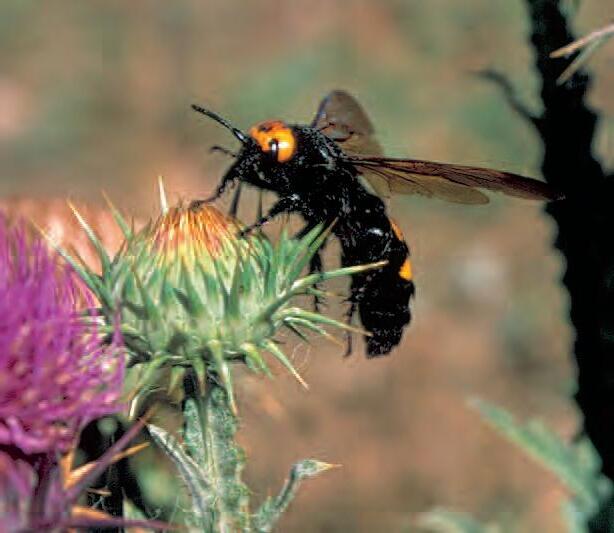
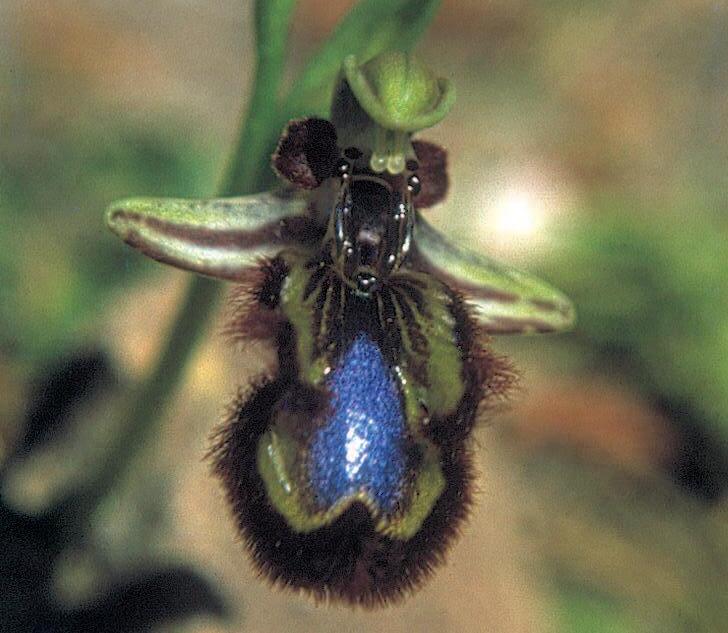
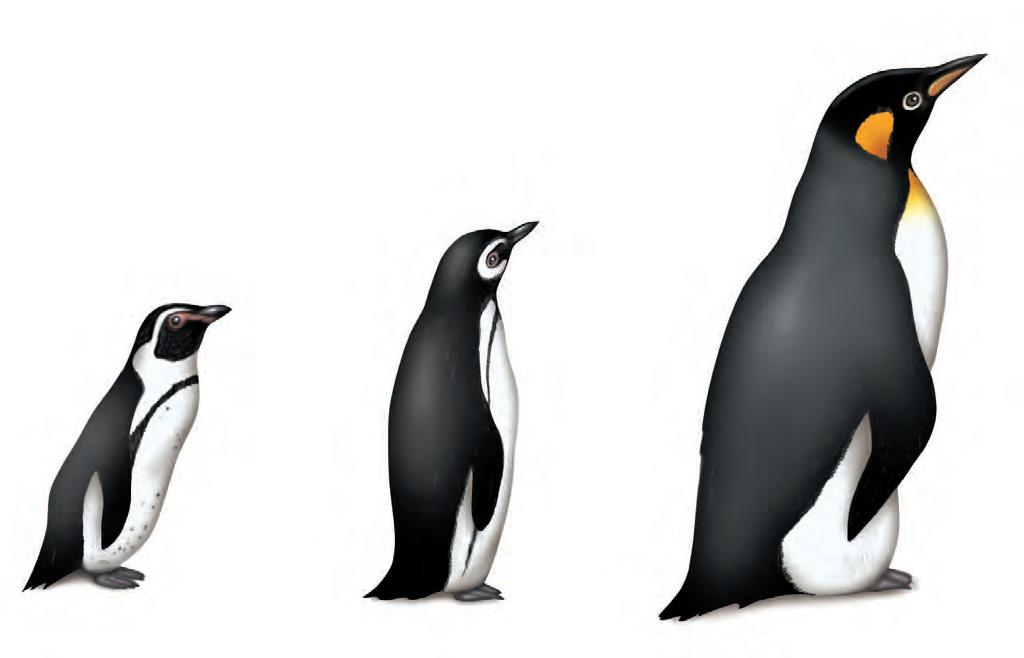
12.22. Sovintelsanimalsqueviuenenlatitudselevades,onfamésfred,solensermésgrossosqueelsque viuenenlatitudsbaixes,declimesmésbenignesofrancamentcàlids.ÉselcasdelpingüídeHumboldt(a),del norddeXile;elmagallànic(b),quearribafinsals52° delatitudS,ielpingüírei(c),quearribaals55°S.
a)Lageneralitzaciód’aquestesregularitatsharebut elnomde regladeBergmann. Peròaquestaanomenadareglanoespotaplicaratotselsanimals.A quinsanimalsespotaplicar?Perquènoespotaplicaralaresta?
b)L’explicaciód’aquestareglaesbasaenlavariaciódelquocientsuperfície/volumd’uncosamesuraqueaquestaugmenta.Comiperquè?
c)Quinaésl’explicacióperselecciónaturaldela regladeBergmann?
d)Uncorol·laridelsfetsimplícitsenaquestaregla ésladenominada reglad’Allen.Quèdiu?Coms’explicaperselecciónatural?
e)Quinnomreplavariaciógraduald’uncaràctermorfològicalllargd’uneixgeogràficenelsid’unapoblació?Coms’explica?Posa’nexemplesenpoblacionsproperes.
12.23. EnunadeterminadapoblaciódelaXina,el 99%delespersonesanalitzadesvanresultarRhpositives(ésadir,portadoresdel’al·leldominant D).
a)Calculalesfreqüènciesgenotípiquesigèniques, suposantqueescompleixlalleideHardy-Weinberg.
b)Perquèéslògicsuposarqueescompleixlallei deHardy-Weinberg?
c)Calculalaproporciódeparellesd’aquellapoblació subjectesalriscdetenirunproblemad’incompatibilitatmaternofilialambrelacióalfactorRh(atèsqueels heterozigotsnoesdiferencien,hiharisc,queesconfirmaràonoenfunciódelgenotipdelfill,entotesles parellesenquèl’homeés D–iladona, dd ).
d)Feselmateixcàlculproposatenlesactivitats a)i c)peraunapoblacióguipuscoanaonel75% delsindividusanalitzatsvanresultarRhpositius.
12.24. Elconceptedarwiniàdelluitaperl’existència sovints’haentèsmalament,malgratqueelmateix Darwinmanifestàquel’usavaenunsentitmetafòric.
a)QuineraelsentitqueliatorgavaDarwin?
b)Quinssónelsexcessoshistòricsaquèconduí lamalainterpretaciódel’expressiódeDarwin?
12.25. Enelssegles XVII, XVIII i XIX,finsal’aparicióde l’obradeDarwin,enclassificarelsorganismeselsnaturalistestractavenderetratarelsistemanatural Segons Darwin,«laveritableclassificacióhadesergenealògica»i«had’estarbasadaenlacomunitatdedescendència» Comentaaquestesfrasesdelnaturalistaanglès.
12.26. Contestaalespreguntessegüents:
a)Quinaéslaprobabilitatqueunadonanodaltonianaialbinaiunhomedaltoniàinoalbítinguinun fillalbíidaltonià?
b)Quinaprobabilitathihaqueunafillad’aquesta parella,sis’aparellaambunhomealbíinodaltonià, tinguiunfillalbíinodaltonià?
c)Isiaquesthomefosalbíidaltonià?
Tantl’albinismecomlavisiódaltonianarepresentenunhandicaprespectedelsfenotipsnormals.En conseqüència,ésd’esperarqueenelprocésd’evolució del’espèciehumanaelsgensresponsableshaginestat llargamentseleccionatsencontra.Tanmateix,mentre quenoméshihadel’ordred’unindividualbíper cada100000,sóndaltoniansundecada15homesi unadecada100dones.Suggereixdiferentshipòtesis explicativesdelfet.
12.27. Unamutaciópuntualenelgenquecodificala síntesidelescadenesde β-globinaorigina,enllocde l’hemoglobina A normal,l’hemoglobina S ofalciforme. Aquestnomal·ludeixalaformadefalçquetenenels eritròcitsdelespersoneshomozigòtiquesperal’al·lel mutant.Aquestfetprovocal’anèmiafalciforme,una malaltiatangreuque,coms’explicaenlespàgines405406,lamajoriadelespersonesafectadesmorenmolt prematurament.Contestaalesqüestionssegüents:
a)Si HbA ésl’al·lelnormali HbS ésl’al·lelmutant, escriuelstresgenotipspossibles.
b)Elseritròcitsdelespersoneshomozigòtiquespera l’al·lelnormalcontenenhemoglobina A.Semblantment,elseritròcitsdelespersoneshomozigòtiquesper al’al·lelmutantnoméscontenenhemoglobina S.En canvi,elseritròcitsdelespersonesheterozigòtiquescontenentantl’hemoglobina A comla S.Quintipusde relacióhihaentreelsdosal·lels?
c)Lespersonesheterozigòtiquesnopateixenanèmia falciforme.D’altrabanda,lapresènciadel’hemoglobina S enelsseuseritròcitsdificultaeldesenvolupament delparàsitcausantdelamalàriai,pertant,lesprote-
geixd’aquestagreumalaltia.Alesregionsafricaneson sovintejalamalària,lafreqüènciadel’al·lel HbS és anormalmentalta.Explicaelmecanismeevolutiuque justificalafreqüènciaelevadadel’al·lel HbS enaquelles zones.
12.28. Llegeixeltexti,després,continualahistòria.
AMalàisia,mentreesrecuperava,l’any1858,d’unes febres,elnaturalistagal·lèsAlfredRussellWallacevaacabardedonarcosalessevesideessobrel’evoluciódeles espèciesperselecciónatural.L’any1858hovacomunicar, percarta,a...
12.29. S’admetquelagranlongituddelcollilespotes delesgirafestenenvaloradaptatiu;ésadir,lipermeten –alasabana–menjarlesfullesdelsarbres,localitzarels depredadorsifugir.Aquestfets’hausatcomaexemple peril·lustrar(sovintmalament)l’explicaciódel’evolució segonsLamarckiDarwin.Diguescomdeuenhaver arribatlesgirafes,apartird’avantpassatsambelcolliles potesméscurts,alseuestatactual,segonsl’explicació lamarckianadel’evolució,segonsl’explicaciódarwinia-
naisegonsl’explicacióneodarwiniana.
12.30. Calculalavariaciódelesfreqüènciesgèniques desprésd’unageneraciódeseleccióambuncoeficient de s =0,2,enelcasdeselecciócontraelgendominantenlessituacionsinicialssegüents:
a) p =0,05; q =0,95d) p =0,8; q =0,2
b) p =0,2; q =0,8e) p =0,95; q =0,05
c) p =0,5; q =0,5
12.31. Raonaicomentalaversemblançadelesfrases següents:
a)Elsorganismesactualsdescendeixendeformes devidapreexistents.
b)Laintroducciód’insecticidespercombatrelesplagueshamodificatlescaracterístiquesdedeterminats ambientsihaoriginatl’apariciód’insectesresistents.
c)L’eficàciadelamedicinaielsavençosdelatècnicahanmodificatl’evoluciódel’espèciehumana.
d)Comaconseqüènciad’aquestaeficàciadela medicinailatècnica,s’hareduïtl’eficàciadelaselecciónaturalcontraalgunsgenscausantsdemalalties greus.
12.32. Intentaferuna«classificaciógenealògica»,en arbre,delsobjectesdibuixats.Buscal’«avantpassat comú»(laformaméssenzillaipetita),estableixlesdiferentsbranquesdel’arbreirecordaque,comajocque és,notéunasolucióúnica,sibééspossiblequefaltin formesintermèdies.Pensaqueelscaràcterssimples solenprecedirelsméscomplexos,queleslíniesevolutivesnotornenenrere,quealgunessónatzucacs,etc.
A
Enquadernador
B
Claudeganxo
C
Puntade70mm
D
Puntade40mm
E
Perndecaphexagonal
F
Cargolde12mm
G
Puntade16mm
H
Perndellautódecaprodó
I Claudeganxopetit
J Clauforadat
K Grapa
L Rebló
M Claudeganxogran
Enl’estudirealdelprocésd’evolució,moltesd’aquestesdisjuntivespodenesbrinar-semitjançantestudisecològics,estudiscomplementarisdefisiologia, decomposiciógenèticaodecomportament,etc., queenaquestmuntatgeanalògicnosónpossibles, comtampocnohosónmoltesvegadesenl’estudi delsfòssils.Enaquestscasos,lainterpretaciódel’evoluciódeixaespaisoberts.
Perndecaprodó
Agulladeganxo
Imperdible
Cargoldecaprodó
Xinxetadecolor
Xinxeta
Clipdetocador
Grapaambaïllant
Cargolde33mmdellautó
Clauderosca
Cargolde33mm
Claudetapisser
1. ElnaturalistabritànicHenryB.Kettlewellvacriar, enelseulaboratori,unespapallonesnocturnesclares ifosquesdelamateixaespècie(Bistonbetularia).Les vamarcarilesvadeixaranarendosindretsdiferents: unaregiónocontaminadaiunadecontaminadaper laindústria.
Les Bistonbetularia, duranteldia,romanenimmòbilssobreeltroncdelsarbres,especialmentdels bedolls.Comqueaquestsarbrestenenl’escorçaplatejada,les Bistonbetularia claresquehidescansen gairebénoesveuen;encanvi,lesfosqueshidestaquen.Sobreelstroncsennegritsperlacontaminaciópassaelcontrari.
Posteriorment,Kettlewell,totutilitzantunllum comatrampa,vacapturartantespapallonescomva poder,ambelsresultatsindicatsalatauladedalt.
Observalataulairesponalespreguntessegüents:
a)Quintipusdepapallonavasobreviuremésa lazonacontaminada?Ialanocontaminada?
b)Quinaexplicaciódónalateoriasintèticadel’evoluciósobrel’origend’aquestesduesvarietatsde papallona?
c)DesprésqueKettlewellhaguésfetaquestexperiment,l’any1952esvanadoptaralRegneUnit mesurescontralacontaminacióatmosfèricaquevan resultarforçaeficaces.Apartird’aquellmomenthi vahaverunaugmentgradualdelaproporcióde papallonesclares.Aquestfet,concordaamblateva respostaalapreguntaanterior?Perquè?
d)Diguessil’augmentdelaproporciódelespapallonesclarescoincideixamblainterpretacióquefaries delsresultatsdel’experimentdeKettlewelliperquè.
2. Prevenirla talassèmiamajor –permitjàdeladetecciódelsheterozigotsielconsellgenètic–ésmoltmés eficaç–imenycostós–queeltractamentpal·liatiu.
Al’illadeMenorca,la β -talassèmiaésmoltmés freqüentquealarestad’Espanya(propdedeuvegadesmés).L’any1992,unequipdecientíficsillencs, encapçalatperE.Oliva,vadonaraconèixerels resultatsd’unestudisistemàtic–permitjàdel’anàlisisanguínia–delsjovesd’entre13i14anys. D’untotalde4368,59noiesi58noispresentavenlaformamenordela β -talassèmia(pelquefa alatalassèmiamajor , eldarrerafectatconeguthi nasquéalprincipideladècadade1980).
Unsaltresresultatssignificatiusd’aquellestudi erenelsquerelacionenla prevalença –nombrede casospermil–amblaprocedènciadelspares(taula1)ielmunicipid’origen(mapa).
Responalesqüestionssegüents:
a)Quinamenademalaltiaésla β -talassèmia? Enquèesdiferencienlaformamajorilamenor? Quinssímptomespresenten?
b)Raonaquinmecanismeevolutiuexplicael mantenimentdelatalassèmia.
c)DelnombredenoiesinoisafectatsdetalassèmiamenoraMenorca,espotdeduiralgunacosa sobreelmodeld’herènciadelgencausal?
d)Representalesdadesdelataula1enforma d’histogramadebarresodediagramacircular.
e)Quèindiquenaquestesdades?Coms’expliquenlesdiferències?
f)Mallorca,EivissaiFormenteratenendades diversesperòclaramentinferiorsde β -talassèmia. Diguesquinsmecanismesevolutiusdiferentsdela selecciópodenexplicar,simésnoenpart,aquests valorsielsdelataula1.Raonalaresposta.
g)Tenintencomptelesdadesdelataula1,digues comésprobablequeevolucionilaprevalençadela talassèmiaal’illadeMenorcaenelspropersanys.
h)Elmapamostralaprevalençadela β -talassèmiapermunicipisal’illadeMenorca.Consultalesdadesdelataula2idiguessihihaalguna menad’explicacióhistòricaperalesdiferènciessingularsenlesdadesdelsdiferentsmunicipis.
i)L’equipdecientíficscalcula–extrapolantles dades–queaMenorcahideviahaverentre1500i 2150personesamb β -talassèmia(sobreunapoblaciótotal,enaquellmoment,de68350habitants).
Taula1.Estudidelaprevalença segonslaprocedènciadelspares
940(22%)
M/M:pareimaremenorquins. M/F:pareomaremenorquíil’altreforaster.
F/F:pareimareforasters.
Taula2.Relacióentrelaprevalença il’origendelsparessegonselsmunicipis Prevalença Municipi %pares menorquins
Quinaera,doncs(acceptantlaxiframésalta),la probabilitatdeserportadordelgenperala β -talassèmia?Ilaprobabilitatdetenirunfillafectatde talassèmiamajor?
j)Comhauriadeserelconsellgenèticdirigita aquestespersones?
k)Finalment,sospesaquinssónelsvalors(entermesd’informació,llibertatd’elecció,prevenció,assistènciasanitàriaisocial,etc.)queaportenaquesta menad’estudis.
3. Desdel’èpocadeDarwin,lesillesconstitueixen unllocprivilegiatperalsbiòlegsevolucionistes;són gairebécomunlaboratorial’airelliureonespoden estudiarlainteracciódelsfenòmensbiogeogràficsiels mecanismesevolutius.
L’any1967,RobertMacArthuriEdwardO.Wilsonvanenfocardemaneraquantitativalaqüestiódel poblamentdelesillesivanelaborarunateoriarigorosaque–comtotabonahipòtesicientífica–dóna comptedemoltesobservacionsrealsin’avançad’altres.Postula,ensíntesi,que–peraungrupqualsevold’organismes–elnombred’espèciespresentsserà igualalnombredelesquehihanarribatmenysel delesques’hihanextingit.D’acordambelmodel matemàticdeMacArthuriWilson,elsfactorsprincipalsqueexpliquenelnombred’espèciespresentssón ladistànciaalcontinentilasuperfícieinsular.Sies tenenencompteelsdosfactorsalhora,tenimque:
N = A + k1 ·log S – k2 ·log D
on A, k1 i k2 sónvalorsconstantsperacadagrup d’organismes(itenenunvalordiferent,posemper cas,peralesorquídiesoperalsocells); S éslasuperfícieinsular,i D, ladistànciaalcontinent.
Perexemple,elnombredelesespèciesdepapallonesdiürnespresentsencadascunadelesilles mediterrànies(tauladelacolumnadeladreta),responalafórmulasegüent:
N =31,5+15,2·log S –21,5·log D
a)Explicaentermesdebiogeografiaquinessón lesraonsquefarienqueenunaillaoceànicahi hagués,posempercas,mésespèciesdepapallonesi d’ocellsquenopasdemamífersterrestres.
Illes mediterrànies
Superfície (km2)
Distànciaal continent (km)
Nombre d’espècies presents
1.Formentera 77115 21
2.Elba 223 11 42
3.Malta 255338 16
4.Kárpathos 301 261 25
5.Eivissa 57292 24
6.Menorca 702210 24
7.Rodes1459 32 46
8.Mallorca 3625167 33
9.Creta 8633 98 34
10.Còrsega 9064133 49 11.Xipre 961691 50 12.Sardenya 24 756303 51 13.Sicília 26 466 8 89
b)Explicaentermesdemecanismesevolutius (selecció,deriva,etc.)perquèalesBalearshiha poquesespèciesd’ocellsidepapallonesendèmiques. Dequinsgrupsd’organismesesperariestrobar-himés endemismes?
c)Argumentaelsdiferentsmecanismesecològics queexpliquenperquèlasuperfícieinsulariladistànciaalcontinentsónvalorsexplicatiusdelnombred’espèciespresentsenunailla.
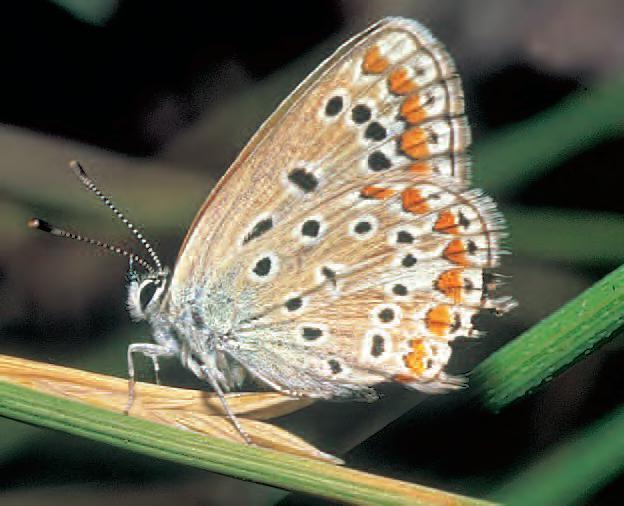
Lablavetacomuna(Polyommatusicarus)ésunapapallona comunaalesillesBalearsialtresillesdelamarMediterrània.
Nombred’espèciesd’ocellsterrestres 2628303234363840424446
Relacióentreelnombred’espèciesd’ocellspresentsales Canàriesilasuperfíciedecadailla.
d)Quinnombreaproximatd’espèciesd’aushom esperariadetrobarenunasuposadaillacanàriade 4000km2 desuperfície?
e)Elgràficdedaltmostralarelacióentreelnombred’espèciesd’ocellspresentsalesillesCanàriesila superfíciedecadailla.Lacorrelacióésmoltbona,malgratque FuerteventuraiLanzarotetenen forçamenysespèciesqueles queprediuelmodel.Quines explicacionsbiogeogràfiqueshi pothaver?
f)Calculaelnombreteòric –d’acordambl’expressiómatemàticaesmentadaanteriorment–d’espèciesdepapallones presentsaRodesiaMallorca. Després,compara’lsambels indicatsenlatauladelapàginaanterior.
g)Calculaelnombred’espèciesdepapallonesquetindria unahipotèticaillamediterràniade5600km2 desuperfíciesituadaenunindretamb unadistànciamínimaalcontinentde70km.
h)ElprofessorPasqualComínvaestudiarelpoblamentdeformiguesdelesBalears.Trobàqueel nombred’espèciesvedonatperl’expressiósegüent:
N =1,302+0,164·log S –0,117·log D
Calculaelnombred’espèciesdeformiguesde Mallorca,MenorcaiEivissa-Formentera,compara’ls ambelsvalorsreals(respectivament,48,33i33)i comentalescausesdelaconcordançaoladiscordança.
i)Apartird’unmodelsimilaral’anterior,l’entomòlegX.Espadalercalculàqueelnombreteòric d’espèciesdeformiguespresentsal’illaMedaGran (uns900malSEdel’Estartit,BaixEmpordà)era de9,peròelvalorrealés15.Quinsfactorsambientalspodrienexplicaraquestasubstancialdiferència?
4. Elsmoixonsdelafamíliadelsdrepànids(parentsde lescaderneres)hanexperimentatalesillesHawaiiuna radiacióadaptativasimilar,peròencaramésexuberant, aladelspinsansdelesGalápagos.Enlail·lustració s’hanrepresentatpropd’un20%delesespècies–algunesjaextingides–quehihabitaren;pràcticamenttotes lesillesgranstenen,otenien,lasevaformaendèmica.
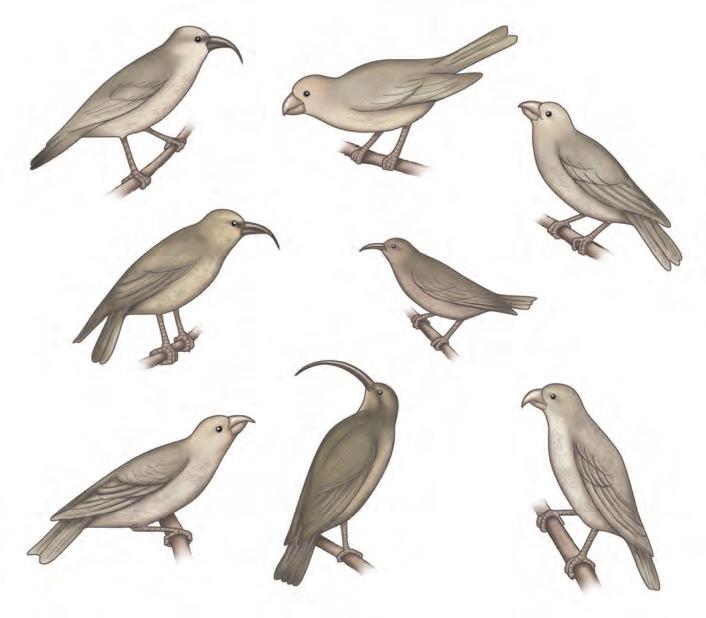
Adiferènciadelsdrepànidsdelarestadelmón, elsdelesHawaiipresentengransdiferènciespelque faalaformadelbec(idelallengua)enfuncióde lasevaalimentació:lesformesllarguesicorbessón pròpiesdemoixonsques’alimentendenèctarod’insectes;becsméscurtsirobustosserveixenpercapolarflorsifruits;d’altres,corbatscomeldelnostre trencapinyes,elsusenperesmicolargranesillavors; algunesespèciesfanservirelseubec,fort,perforadarlafusta,talmentcomfanelspicots…
a)Sihaguessisd’agruparaquestsocellsendosgrans grups,segonselbec,comelsclassificaries?
b)JustificaaquestafrasedelzoòlegE.Wilson: «UnaúnicaespèciequehaguéscolonitzatlesHawaii fa100000anyspodriahaverdonatfàcilmentorigenacentenarsd’espècies,cadaunaendèmicaen l’actualitatd’unailla,unavallounaserraladaconcretes».
c)LafaunailafloradelesillesHawaiisónrealmentmoltnotables.Quinessónlesraonsgeològiquesigeogràfiquesquehofanpossible?
d)Nomésd’espèciesd’insectes,alesillesHawaii n’hiha10000d’endèmiques.Quinesaltresparticularitatsconeixesdelafaunailaflorahawaianes?
e)Quèsignifical’expressió radiacióadaptativa?
f)Delesformesdedrepànidsrepresentadesenla il·lustració,quinespodrienestarmésapropdel’avantpassatcomúdetotes?Quinessónformesmés especialitzades?
g)Descriuelspossiblesesdevenimentsdelahistòriaevolutivad’aquestsocellshawaians:colonització,diversificació,especiació…Fesservirlesexpressions aïllamentgeogràfic,aïllamentreproductor,competidor,depredador i nínxolecològic.
h)Siunmoixóanésd’unaillaaunaaltrailla pobladaperunesaltresformesd’aquestdrepànid, seriapossiblelareproduccióentreelmoixónouvingutielsquejahabitavenl’illa?
5. Elsarbresgenealògicsquehihaalpeud’aquesta pàginamostrenl’herènciadel’albinisme(arbre a), d’unabanda,idelacoreadeHuntington(arbre b),de l’altra,enl’espèciehumana.Observaatentamentels arbresgenealògicsidesprésfeslesactivitatsqueet proposemacontinuació:
a)Quinéselmodeld’herènciad’aquestesdues malalties?
b)Quinaés,peral’arbregenealògic b,laprobabilitatqueunaparellaformadapelsindividusIII-4i III-5tinguiundescendentafectatdecoreadeHuntington?Éslamateixaprobabilitatambindependènciadelsexedeldescendent?
c)Enelcasdel’arbregenealògic a,quinaéslaprobabilitatqueungermàdel’individuIV-3estiguiafectatperl’albinisme?Isifosunagermana,tindria lamateixaprobabilitatqueelseugermàdepatirla malaltia?
d)Quinsseranelsgenotipsdelsindividusdel’arbre a relatiual’albinisme?Escriu-los.
e)Ladegeneraciónerviosailademènciasevera pròpiesdelacoreadeHuntingtonsolenmanifestarseentorndelsquarantaanys.Malgratqueésuna malaltiatangreu,presentaunataxarelativamentelevada:1decada20000individusn’estàafectat.Relacionaaquestsdosfetsambelmodeld’herènciadela malaltia(resposta a)isuggereix-neunaexplicació plausible.
6. Lafibrosicística–produïdaperlapresènciad’una variantanòmaladelaproteïnaCFTCR–ésuna malaltiahereditàriadeterminadaperungenrecessiui autosòmic(situat,concretament,enelcromosoma7). Estractad’unadelesmalaltiesgenètiquesméscomunes,queafectaunadecada3000persones.
a)Siunhomeiunadonasansperaquestcaràcter tenendosfillsambfibrosicísticaiunfillnormal, quinaéslaprobabilitatqueelseuproperfilltingui fibrosicística?
b)Quinaéslaprobabilitatqueelfillnoafectatd’aquestaparellasiguiheterozigotperal’al·lelquedeterminalamalaltia?
c)Perquèlafibrosicísticatéconseqüènciestan severessobrelasalutsiestàprovocadaperunamutacióqueafectatresnucleòtids?
d)Siunhomeiunadonasanstenentresfills,una noiasanaiunnoiiunanoiamalaltsdefibrosicística,quinaéslaprobabilitatquelanoiasanasiguiportadoradelgenperalafibrosicística?
e)Quinéselgenotipdelanoiasana,eldelsseus paresieldelsseusgermans?
f)Suposantquelanoiasanasiguiportadoradel genperalafibrosicística,quinaprobabilitattéde tenirunfillqueestiguiafectatperaquestamalaltia hereditària?
g)Sicapdelsdosmembresdelaparelladelapreguntaanteriornoésdaltonià,peròelparedelanoia hoés,diguesquinaéslaprobabilitatquetinguin:1) unnendaltonià;2)unanenadaltoniana;3)unnen daltoniàiambfibrosicística;4)unanenadaltoniana iambfibrosicística.
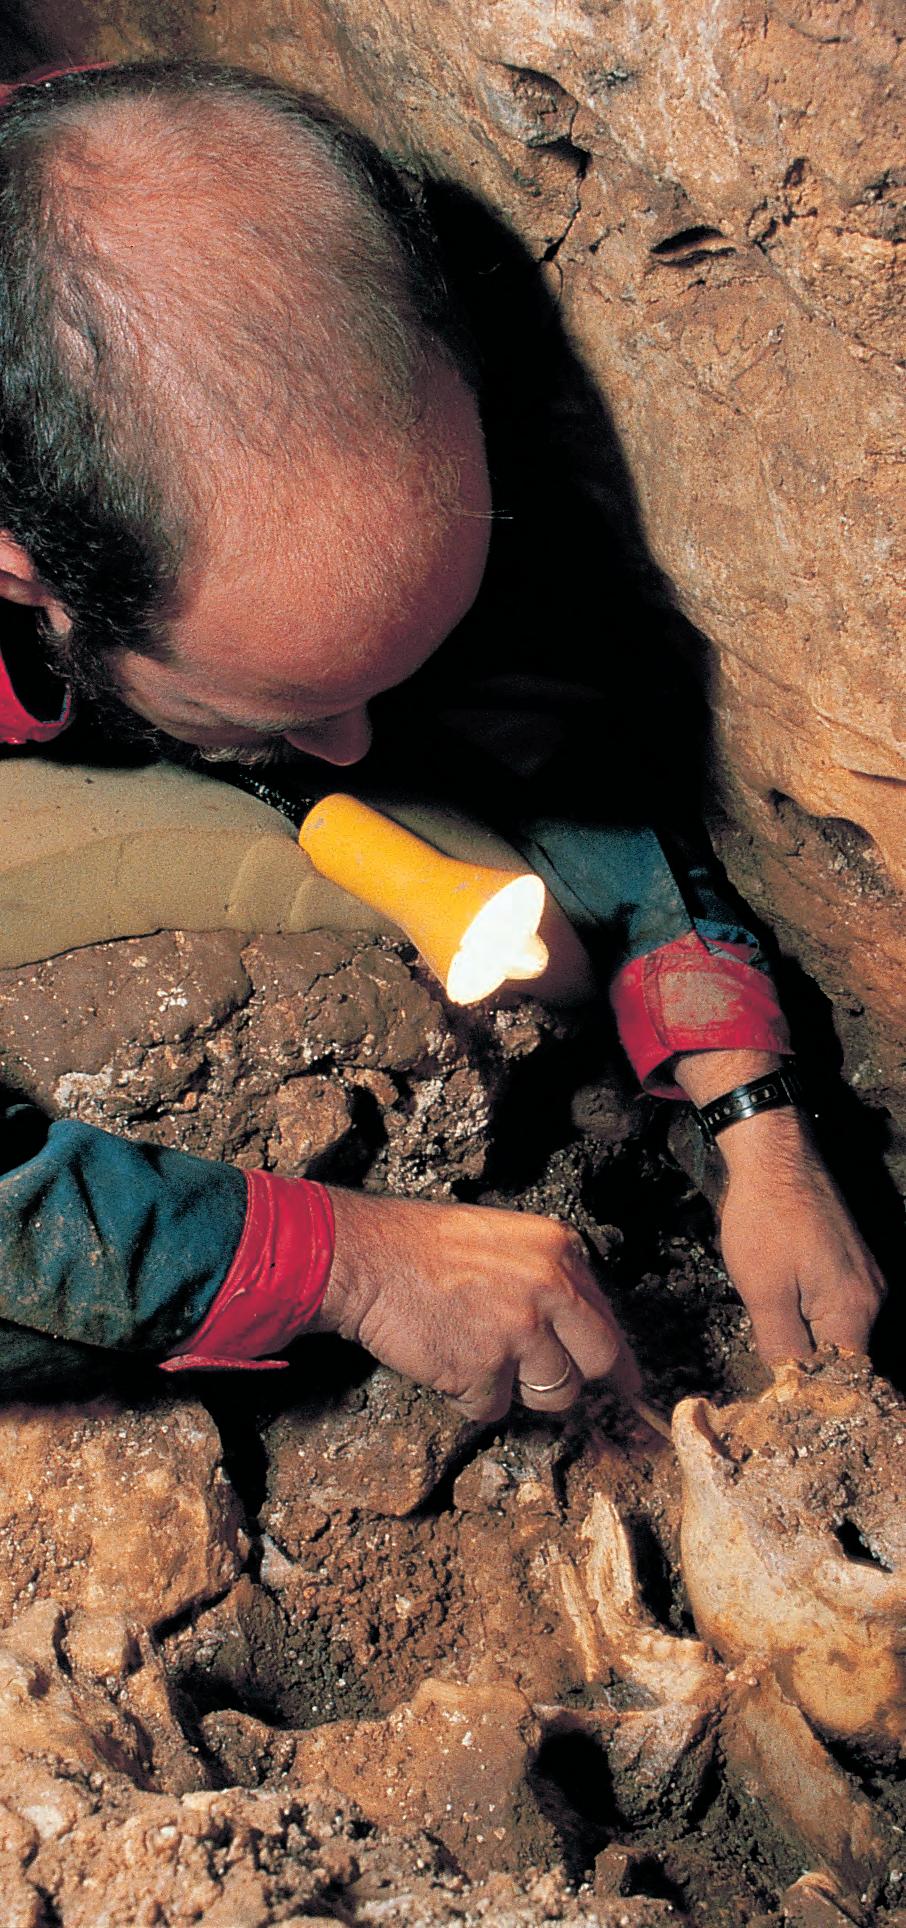
L’evolució humana: l’hominització
1.Els primats
2.Característiques diferencials dels humans. L’hominització
3.Les dades paleontològiques
4.El gènere Homo Esquema
Excavació a la Sima de los Huesos (serra d’Atapuerca, Burgos).
Tots els éssers humans formen part d’una mateixa espècie del regne animal, l’Homo sapiens, de l’ordre dels primats i de la família dels homínids. Des del punt de vista anatòmic i fisiològic, l’ésser humà s’assembla molt als grans simis actuals, especialment al ximpanzé. Aquesta semblança permet afirmar que l’ésser humà i el ximpanzé tenen avantpassats comuns. Com les altres espècies d’organismes, l’Homo sapiens es va originar per evolució d’altres espècies i està sotmès a les mateixes lleis biològiques generals que la resta d’éssers vius.
És possible que l’Àfrica fos habitada en el passat per simis extingits estretament relacionats amb el goril·la i el ximpanzé, i com que aquestes dues espècies són actualment les més properes a l’home és més probable que els nostres primers progenitors visquessin al continent africà que no pas en qualsevol altre indret.
CHARLES R. DARWIN, L’origen de l’home (1871)
Els primats constitueixen un ordre de mamífers euteris (és a dir, amb placenta) definit i designat per Carl von Linné l’any 1758 amb aquest nom (que significa ‘els primers’), per indicar el grup zoològic d’organització més avançada. En l’ordre dels primats s’inclouen tots el micos i l’ésser humà.
Les característiques que diferencien l’ordre dels primats es poden resumir de la manera següent:
– El cos dels primats es caracteritza per estar menys especialitzat que el d’altres ordres de mamífers, la qual cosa es tradueix en una gran capacitat d’adaptació.
– El crani està més desenvolupat que la cara. En general, en l’evolució dels primats es comprova una clara tendència a la reducció del musell –tan característic d’altres grups de mamífers– fins a desaparèixer totalment; la cara mostra una clara tendència a ser vertical i el crani, a ser el més esfèric possible.
– S’hi dóna una clara tendència a l’augment de la mida del cervell, que en els primats és el major amb relació a la mida del cos. A més de l’augment de la mida, el cervell dels primats experimenta una progressiva complexitat, amb un augment de les circumvolucions cerebrals i un clar desenvolupament de l’escorça cerebral.
– Hi ha un progressiu perfeccionament de la vista, que passa a ser el principal sentit, en detriment de l’olfacte, que és el principal sentit en la majoria dels mamífers. Els ulls passen a estar a la part central i davantera de la cara. Les òrbites estan totalment tancades. El perfeccionament de la vista, que es fa més aguda i estereoscòpica, va ser fonamental per a l’adaptació d’uns animals de vida arborícola.
– El tronc tendeix a la posició erecta, fet que afavoreix l’alliberament de les extremitats superiors respecte a la locomoció.
– Les extremitats són llargues, acabades en cinc dits (pentadactília) i amb un tipus d’articula-
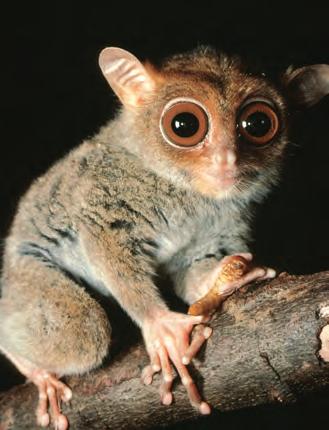
El conjunt de canvis evolutius que han originat l’espècie humana s’anomena hominització i és estudiat en camps científics diferents: localització i estudi de restes fòssils (paleoantropologia) i estudis d’anatomia, embriologia i bioquímica comparades, per tal d’establir les relacions dels éssers humans amb els altres grups de primats superiors i confeccionar possibles arbres genealògics. La història del llinatge humà es va iniciar a l’Àfrica. Ardipithecus i Australopithecus són els avantpassats del gènere Homo, conegut des de fa uns 2,5 milions d’anys. S’han establert diverses espècies d’aquest gènere: habilis, ergaster, erectus, neanderthalensis…Homo sapiens és una espècie poc especialitzada, molt recent i que en poc temps ha colonitzat tota la Terra.
ció al tronc que permet una àmplia gamma de moviments. Les extremitats anteriors no solament acompleixen funcions locomotores, sinó que es transformen en òrgans que permeten la manipulació d’objectes.
– Les mans i els peus tenen el dit polze en posició oposable, amb relació als altres quatre dits, cosa que facilita la capacitat prènsil o d’agafar objectes. Els dits tenen ungles planes i no urpes, amb dermatòglifs, és a dir, amb senyals a la cara palmar de les mans i dels peus que augmenten l’adherència i incrementen la sensibilitat tàctil.
– La locomoció està dominada per les extremitats posteriors, amb una clara tendència al bipedisme postural. El bipedisme locomotor complet únicament és propi de l’ésser humà.
– La dentadura és poc especialitzada, sense les grans molars trituradores característiques dels mamífers herbívors ni les grans canines dels mamífers carnívors.
– La major part dels primats tenen cua, que en algunes espècies és un veritable òrgan prènsil. En els primats més evolucionats, com ara els pòngids i els homínids, la cua ha desaparegut.
– La grandària del cos de les diferents espècies de primats oscil·la entre la del gènere Microcebus, d’uns 100 grams de pes, fins als mascles de goril·la, amb exemplars que poden superar els 160 kg.
– Moltes de les característiques descrites són adaptacions molt útils per a la vida arborícola, pròpia de la majoria dels primats. No obstant això, algunes espècies, com ara els papions, desenvolupen la seva vida a les sabanes.
– La dieta dels primats és molt variada, amb força espècies completament vegetarianes, mentre que altres són omnívores i incorporen a la dieta petits vertebrats i invertebrats, com ara insectes. Els papions i els ximpanzés, malgrat la seva dieta vegetariana, de vegades cacen i consumeixen altres mamífers.
– A diferència dels altres mamífers, les femelles dels simis presenten un cicle sexual de tipus menstrual i una tendència a produir una sola cria en cada embaràs. La durada del període de creixement de les cries s’incrementa notablement respecte al de les cries d’altres mamífers, ja que arriba fins a la maduresa sexual.
– Tenen una clara tendència a formar grups, ja sigui familiars o molt més amplis, i una complexa conducta social.
– Les espècies de primats actuals, aproximadament 300, viuen fonamentalment en ecosistemes tropicals i subtropicals d’Amèrica Central i del Sud, Àfrica i Àsia. No es coneixen espècies natives actuals, tret de l’ésser humà, a l’Amèrica del Nord, Europa i Austràlia. Per la seva fauna de primats primitius, mereix una menció especial l’illa de Madagascar. Un nombre significatiu d’espècies de primats tenen una distribució geogràfica molt restringida, i el perill d’extinció és molt gran. La destrucció dels hàbitats naturals i la cacera en són les causes principals. – Els primats són un dels grups de mamífers placentaris més antics, i la majoria dels especialistes creuen que es van originar a partir de mamífers insectívors. Les restes més antigues de primats són del cretaci superior, fa uns 70 milions d’anys.
Els hominoïdeus
Els hominoïdeus es van originar a l’Àfrica fa, almenys, 23 milions d’anys, van ser nombrosos en aquest continent i després també ho van ser a Euràsia. Van arribar al seu màxim desenvolupament i a la seva major diversitat fa uns 10 milions d’anys, temps en què va començar un ràpid declivi. Actualment, l’única espècie d’hominoïdeus abundant i en expansió és la de l’ Homo sapiens Les raons que expliquen aquest declivi són dues: en primer lloc, la pèrdua d’hàbitats (grans selves plujoses i boscos monzònics) a causa d’un canvi climàtic global amb un clar refredament del planeta, que va facilitar, a l’Àfrica, l’extensió de sabanes dominades per plantes herbàcies; en segon lloc, la competència amb un altre grup de simis del Vell Món, els cercopitecoïdeus, avui dia més diversificats i abundants que els hominoïdeus.
Les diferents espècies de lèmurs són exclusives de Madagascar.
Estructura del cap d’un estrepsirí (lèmur de cua anellada), a l’esquerra, i d’un haplor (bonobo), a la dreta.
Classificació dels primats
Subordre estrepsirins (Strepsirrhini) Com en altres mamífers, els orificis nasals externs (o narius) estan voltats per una zona de pell nua i humida, anomenada rhinarium, continuada per sota en un llavi partit en dos i fixat a les genives per una membrana. Aquesta disposició limita molt l’expressió de les emocions per mitjà de la mímica facial.
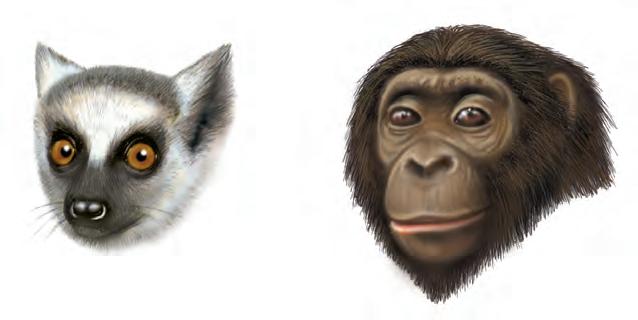
• Infraordre lemuriformes. Inclou els lèmurs (gènere Lemur), els indris (gènere Indri) i l’ai-ai (gènere Daubentonia), tots de mida petita i de dieta insectívora i vegetariana. Són exclusius de l’illa de Madagascar, on van evolucionar i es van diversificar en condicions d’aïllament geogràfic. Malauradament, l’arribada relativament recent dels humans a l’illa ha suposat la degradació dels hàbitats boscosos en què viuen i la desaparició de nombroses espècies.
Arbre filogenètic dels simis.
• Infraordre lorisiformes. Inclou els loris asiàtics (gènere Loris) i els pottos i els gàlags de l’Àfrica subsahariana. Temps (milions d’anys)
Mona aranya Còlob
lA tser isim s M o n e s de l Nou Món
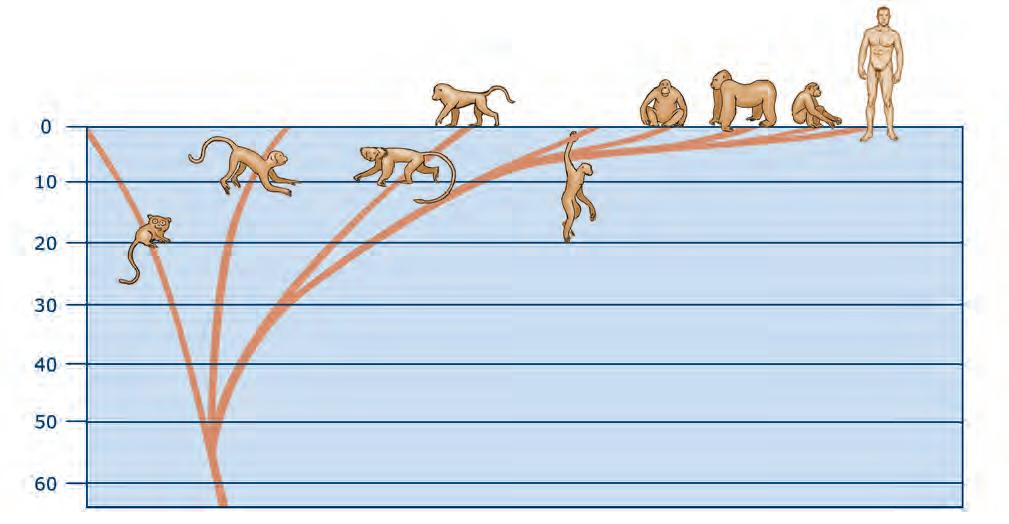
Babuí OrangutanGoril·la Ximpanzé Bonobo Ésser humà Gibó
Subordre haplorins (Haplorhini)
No presenten rhinarium al voltant dels narius, el llavi superior és continu i mòbil i els ulls es troben en posició frontal. Aquestes característiques els permeten una expressivitat facial de les emocions molt variada.
• Infraordre tarsiformes. Són petits, nocturns, amb els ulls molt grossos, la cua llarga i les extremitats posteriors molt llargues i adaptades al salt. Els tàrsids viuen a Sumatra, Borneo, les Cèlebes i les Filipines.
• Infraordre simiformes (simis o antropoides)
– Secció platirins (Platyrhini). Tenen la paret nasal ampla, cosa que separa els narius, i la cua llarga i sovint prènsil.
- Superfamília ceboïdeus (Ceboidea). Mones del Nou Món que viuen a les selves d’Amèrica Central i del Sud. Són arborícoles, insectívores i frugívores, la majoria tenen costums diürns i són relativament sociables. Entre d’altres, aquesta superfamília inclou les mones udoladores, la mona caputxina i la mona aranya.
– Secció catarins (Catarhini). Mones del Vell Món. Tenen la paret nasal estreta i els narius junts dirigits cap avall. La cua no és mai prènsil i els hominoïdeus no en tenen.
- Superfamília cercopitecoïdeus (Cercopithecoidea). Habiten a les regions temperades, subtropicals i tropicals d’Àsia i d’Àfrica, són quadrúpedes i gairebé tots diürns. Aquesta superfamília inclou els babuïns, els macacos, els mandrils, els cercopitecs, els còlobs, etc.
- Superfamília hominoïdeus (Homonoidea)
- Família hilobàtids (Hylobatidae). Viuen al sud-est asiàtic, són prims i lleugers, amb les extremitats superiors molt desenvolupades i amb una agilitat extraordinària. Aquesta família inclou els gibons i el siamang.
- Família homínids (Hominidae). Inclou els grans simis actuals i els humans.
- Subfamília ponginins (Ponginae). Inclou l’orangutan (Pongo pygmaeus), que habita a les selves humides de Sumatra i Borneo.
- Subfamília hominins (Homininae)
- Tribu panini. Inclou els dos grans simis africans: el goril·la (Gorilla gorilla), el primat actual més gros, que habita a l’Àfrica, i el gènere Pan, que inclou dues espècies, el ximpanzé comú (Pan troglodytes) i el ximpanzé nan o bonobo (Pan paniscus).
- Tribu hominini. Inclou el gènere Homo, amb una sola espècie vivent, la de l’Homo sapiens.
a) Orangutan. b) Ximpanzé.
regnes biogeogràfics.
13.1. Relaciona cada nom del primer grup amb el nom o sintagma que li correspon del segon grup:
Primer grup:
Ximpanzé, dermatòglifs, ai-ai, bonobo, placentari, catarins, Hylobates, cercopitècid, primats, pongo.
Segon grup:
Mones del Nou Món, els primers, ximpanzé nan, mandril, Pan troglodites, orangutan, exclusiu de Madagascar, empremtes a la pell, gibó, euteris.
13.2. Observa el mapa de sota, en el qual es mostren els regnes biogeogràfics. A partir de les dades del text i de les consultes bibliogràfiques que calgui, respon a les qüestions que hi ha a continuació:
a) Digues tres primats de l’illa de Madagascar.
b) A Madagascar no hi ha primats superiors. A què és degut aquest fet?
c) Quin és el primat més gros que existeix actualment? On viu?
d) Digues les principals zones geogràfiques actuals on no existeixen primats nadius (no introduïts per l’ésser humà).
e) Fes un quadre amb el nom comú, el nom científic, la distribució geogràfica i el regne al qual pertany cada un dels primats següents: macaco, mona aranya, lèmur, tàrsidi siamang.
13.3. En la il·lustració de sota es mostra la posició habitual del cos, en desplaçar-se, d’un mico cercopitècid, d’un goril·la i de l’ésser humà.
Descriu aquestes posicions i compara-les pel que fa a:
a) la disposició de la columna vertebral;
b) les funcions i l’especialització de les extremitats;
c) la posició del cap.
Goril·la
Evolució de l’esquelet axial i apendicular durant l’hominització.
Ésser humà
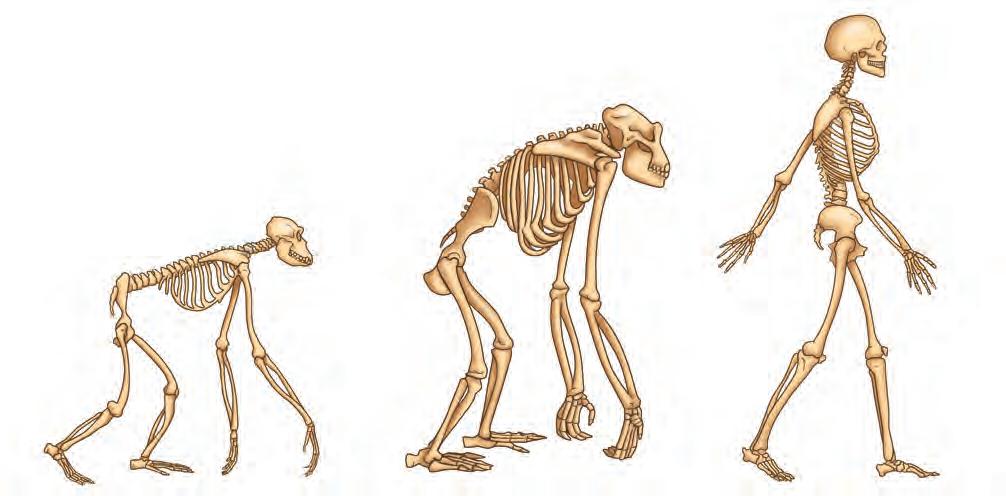
2.Característiques diferencials dels humans. L’hominització
Les principals característiques distintives de l’espècie humana són la forma de caminar bípeda, un cervell molt desenvolupat en volum i en complexitat estructural, una gran capacitat per fabricar utensilis molt variats i de materials molt diversos, un llenguatge articulat complex i una infantesa llarga que possibilita un llarg període d’aprenentatge. El fet que els antropòlegs i els paleontòlegs incloguin els grans simis antropomorfs (gibó, orangutan, goril·la i ximpanzé) i l’espècie humana en una mateixa divisió, els hominoïdeus, de l’ordre dels primats, vol dir que deriven d’antecessors comuns, però cadascun ha anat manifestant de manera progressiva les seves pròpies tendències evolutives.
El procés evolutiu que va determinar l’aparició de l’espècie Homo sapiens s’anomena hominització.Per la majoria dels investigadors, aquest procés es va produir mitjançant un seguit de canvis progressius, sense grans ruptures, i seguint els mateixos mecanismes biològics que han determinat l’aparició de les altres espècies biològiques.
El ximpanzé, per caminar, recolza les extremitats anteriors sobre els artells.
L’espècie Homo sapiens és una espècie poc especialitzada, és a dir, conserva caràcters generals. L’hominització es caracteritza per un fet exclusiu: l’adaptació al medi no es basa únicament en les modificacions anatòmiques i funcionals que experimenta l’organisme, sinó també en les modificacions que l’ésser humà és capaç de provocar en el mateix medi. Al llarg de l’evolució humana s’ha produït una progressiva independència respecte a les condicions ambientals i una submissió més feble a les lleis de la selecció natural.
L’aparició i l’evolució de la cultura humana han permès a l’ésser humà adquirir adaptacions extrasomàtiques de gran eficàcia, sense necessitat de transformar el seu cos: fabricació d’eines, vestits, vehicles, etc.
El desenvolupament cultural és la clau de l’èxit evolutiu de l’ésser humà, ja que li permet adaptar-se amb eficàcia i rapidesa a ambients i circumstàncies molt diversos.
Des del punt de vista morfològic i anatòmic, els canvis que han intervingut en la diferenciació del llinatge humà són tres: el bipedisme,els canvis en la dentició,i l’encefalització i el llenguatge.
El bipedisme, és a dir, la capacitat que tenen els humans de desplaçar-se fent servir tan sols les extremitats inferiors, és el primer caràcter que defineix el llinatge humà i el que ha canalitzat moltes altres característiques del grup. El bipedisme suposa una reorganització molt completa de l’esquelet, i els principals canvis que implica són els següents:
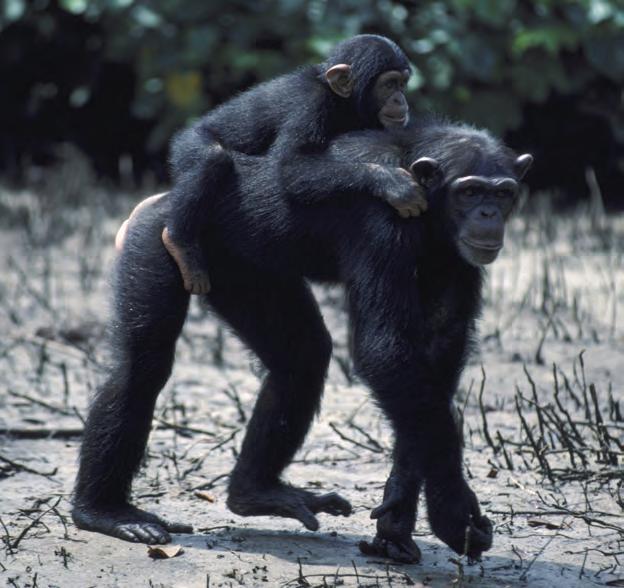
– La sustentació vertical del cap en la columna vertebral,amb el foramen magnum (que permet la comunicació entre l’encèfal i la medul·la espinal) en posició horitzontal. En els grans simis, el cap està inclinat cap endavant (necessiten una gran musculatura per sustentar-lo) i el foramen magnum és inclinat.
– Una caixa toràcica en forma de barril. Els ximpanzés, per exemple, la tenen en forma d’embut invertit, ja que utilitzen els braços en la locomoció.
– El canvi de curvatura de la columna.
– La rotació de la pelvis,que assoleix una forma de receptacle i que no és plana com en els ximpanzés.
– Unes extremitats inferiors més llargues que les superiors,amb una proporció del pes corporal més gran,
la qual cosa fa que el centre de gravetat del cos tingui una posició inferior.
–La inclinació del fèmur amb relació al genoll. En repòs, els dos peus queden pròxims a la línia mitjana del cos, de manera que durant la marxa el centre de gravetat del cos no presenta desplaçaments laterals importants.
–Un hàl·lux (dit gros del peu) no oposable que empeny la cama en caminar i és l’últim punt de contacte amb el terra. La planta del peu humà té una curvatura que en caminar ajuda a transmetre la força des del taló.
La posició erecta permanent i la marxa bípeda van originar una clara especialització de les extremitats: les posteriors, fortes, robustes i llargues, destinades a funcions locomotrius i de sosteniment del cos, i les anteriors, alliberades de les tasques de locomoció, menys potents, però dotades d’una gran mobilitat que permet la realització d’una àmplia gamma d’activitats.
Els peus, sobre els quals recau el pes del cos, han perdut mobilitat i capacitat prènsil i han guanyat resistència i superfície de sosteniment. Els ossos dels peus s’articulen i formen un arc per esmorteir els cops que es produeixen durant la locomoció.
Comparada amb la dels pòngids, la mà humana és més curta i ampla, i té un polze ben desenvolupat que és perfectament oposable als altres dits.
Alliberada de funcions locomotores i de recolzament al terra, la mà perd fortalesa i es transforma en una de les estructures més perfectes de l’anatomia humana, amb funcions prènsils, manipuladores i tàctils. Un benefici indiscutible de la marxa bípeda és la capacitat de transportar coses amb les mans i els braços, ja sigui aliments, cries o objectes diversos.
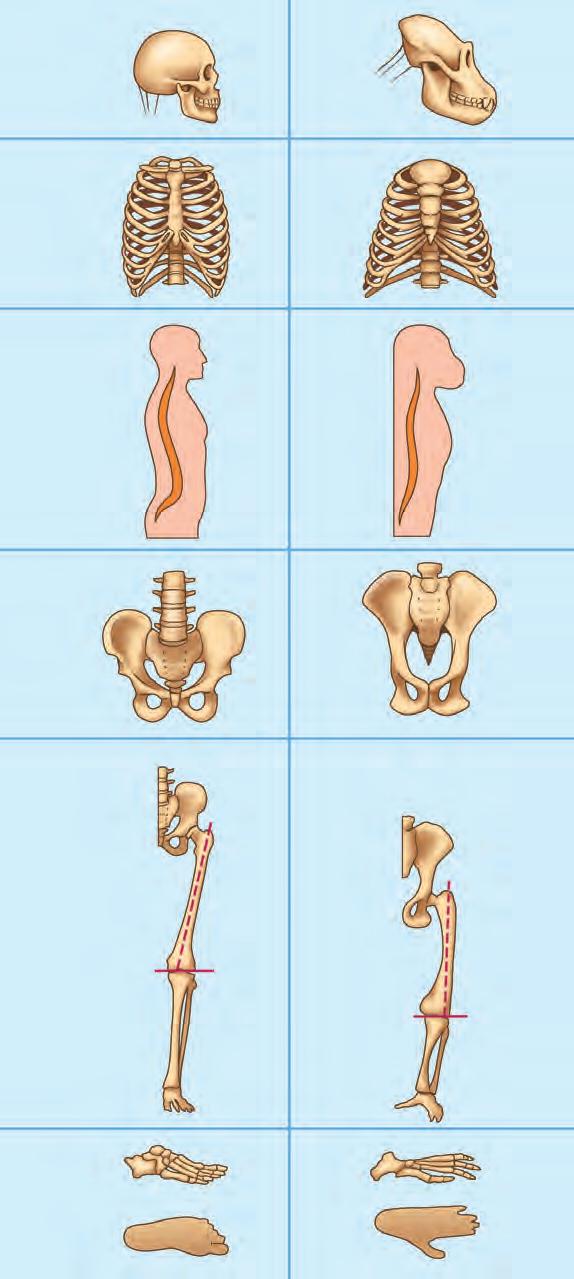
El bipedisme aporta avantatges clars en la regulació de la temperatura corporal. Un individu bípede rep menys radiació solar que un de quadrúpede. En separar més el cos del terra, s’allunya d’un focus de calor i es beneficia més de les brises per refrescar el cos. La locomoció
Principals canvis esquelètics que va implicar el bipedisme i comparació d’aquests canvis amb les parts homòlogues d’un antropoide quadrúpede actual.
Australopithecus africanus
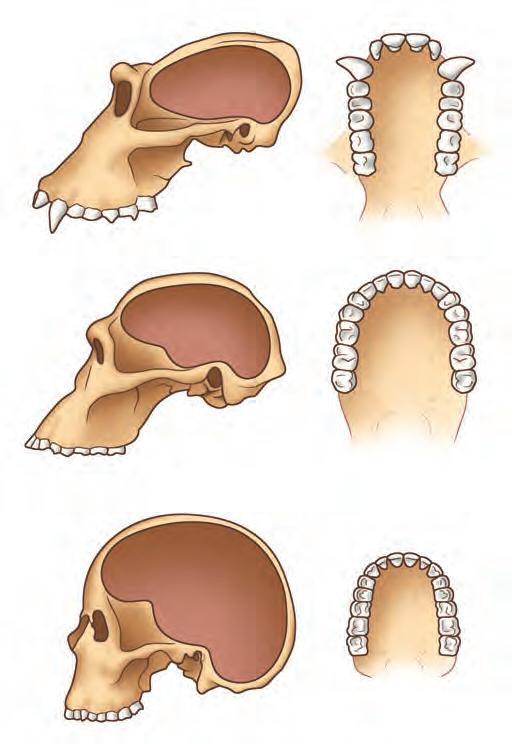
Estructura comparada entre el cap i el maxil·lar d’un pòngid actual (goril·la), d’un homínid fòssil (Australopithecus africanus) i d’un ésser humà actual. S’observa com la cara retrocedeix i es redueix, fins a la posició vertical en l’ésser humà. El crani es fa més esfèric, augmenta la capacitat cranial i es redueix el gruix dels ossos. El maxil·lar es redueix i les dents es fan més petites.
bípeda és probablement la millor solució per a un homínid que es veu obligat a recórrer llargues distàncies sota el sol.
Al llarg del procés de l’hominització es produeixen canvis importants en la dentició que es poden resumir en una tendència a la dentició poc especialitzada i adaptada a una dieta omnívora i una progressiva reducció de la mida de les dents i dels maxil·lars.
En els hominins, i en comparació dels grans simis, les dents canines són més petites, presenten un dimorfisme sexual més petit i no sobresurten de les altres dents, la qual cosa facilita el moviment lateral i fa més efectiva l’acció de triturar.
Hi ha també una clara reducció, fins a la completa desaparició, de diastemes (separació entre dents adjacents) i hi manca el complex de cisalla entre la canina superior i la primera premolar inferior, propi d’organismes d’alimentació bàsicament carnívora.
Les peces dentals es fan més petites. En els éssers humans, la dentadura és més petita amb relació a la massa corporal que en els grans simis i està preparada per processar productes d’alta qualitat nutritiva i bona digestibilitat.
L’encefalització desenvolupada durant l’hominització comporta un augment de la capacitat craniana i una progressiva complexitat de l’estructura del cervell.
Al llarg de l’hominització, en uns tres milions d’anys, el volum del cervell humà ha passat d’uns 400cm3 a 1350cm3. La diferència del cervell dels humans amb relació al dels altres primats no és solament volumètrica. El cervell humà és el que té més neurones i un desenvolupament més gran de l’escorça cerebral o matèria grisa, gràcies a l’augment dels plecs o circumvolucions cerebrals. L’escorça o còrtex cerebral desenvolupa un paper essencial en la conducta racional, en el pensament abstracte, en la memòria i en el complex sistema de coordinació dels moviments.
El llenguatge és la base de totes les activitats socials característiques de l’espècie humana. De fet, es pot afirmar que l’origen de l’ésser humà està lligat a l’aparició del llenguatge. El llenguatge humà és una
activitat cerebral que requereix el suport d’unes altres estructures anatòmiques: l’òrgan de la parla (situat a la laringe), la llengua i els llavis. Es pot definir el llenguatge humà com la facultat de comunicar, entre els humans, els pensaments i els sentiments mitjançant un codi que inclou un nombre potencialment infinit de missatges significatius, en forma de sons articulats, que tenen la propietat de desplaçament i de jerarquia (sons, paraules, frases).
El llenguatge humà depèn de l’activitat de certes zones de l’escorça cerebral de l’hemisferi esquerre del cervell, en concret d’unes àrees localitzades a prop de la cissura de Silvi, com ara l’àrea de Broca, que controla els moviments necessaris per produir sons, i l’àrea de Wernicke, que intervé en la percepció i la comprensió dels sons.
El llenguatge humà és únic entre els animals, i els intents d’ensenyar-lo als primats superiors proporcionen resultats poc significatius.
Els treballs per saber en quin moment del procés d’hominització es va iniciar el llenguatge es basen en l’estudi dels motlles endocranials dels fòssils dels homínids i en lalocalització de vestigis fòssils de l’òrgan de la parla, estructura musculosa i cartilaginosa situada al coll que rarament fossilitza. Alguns autors sostenen que el llenguatge humà va començar fa uns dos milions d’anys amb els primers representants del gènere Homo, els Homo habilis. Altres especialistes, al contrari, sostenen que el llenguatge és una adquisició molt recent, de fa uns 50000anys, i que és exclusiva de l’espècie Homo sapiens
Encèfal humà vist a través d’un escàner. En groc, el cervell; en vermell, el cos callós; en blau, el tronc cerebral i el cerebel.
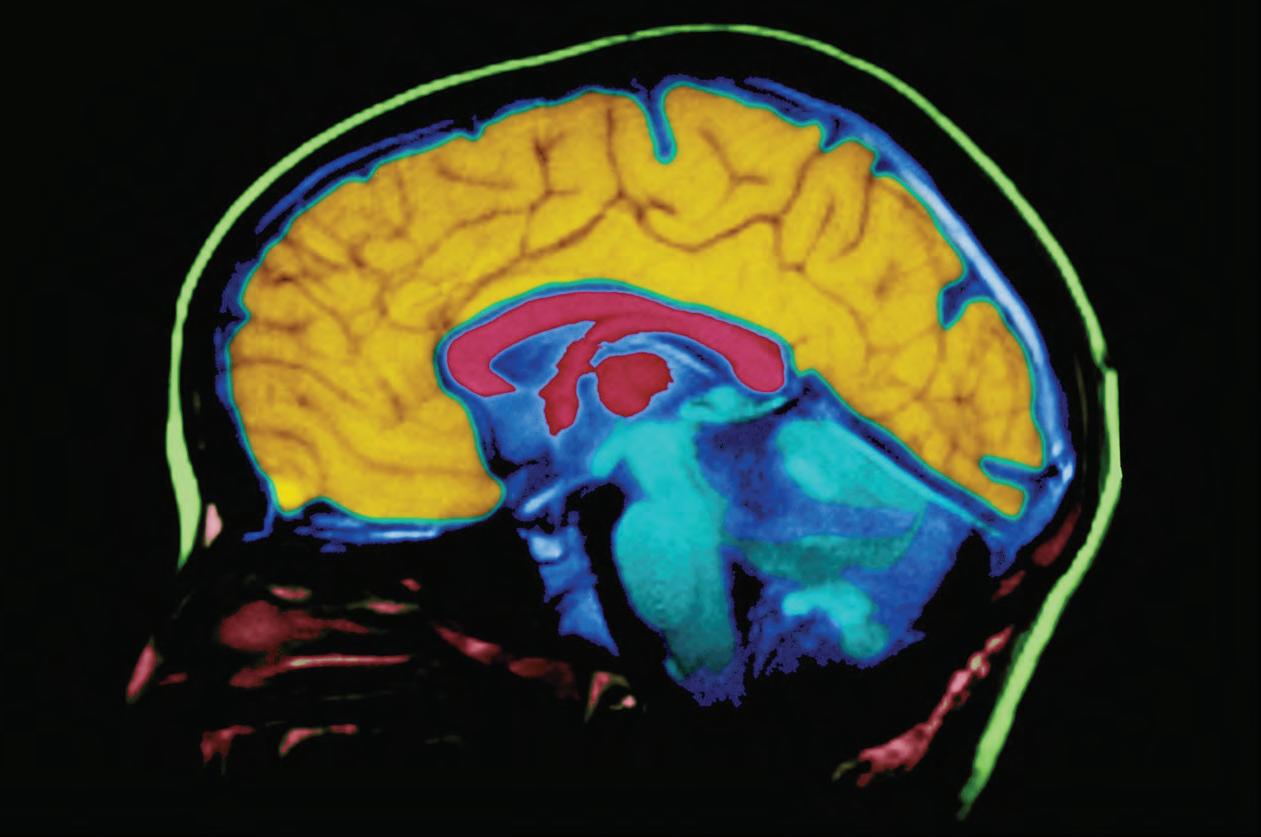
Pintures mesolítiques de la cova dels Cavalls, a la Valltorta (Alt Maestrat).
Els estudis sobre l’hominització
L’estudi de l’origen i l’evolució del llinatge humà es fa avui dia en camps d’estudi diferents que requereixen equips multidisciplinaris. Alguns d’aquests camps són la paleoantropologia, la paleogeografia, la paleoecologia, l’antropologia molecular i les tècniques de datació.
– Els estudis paleoantropològics permeten la localització i la classificació de restes fòssils d’homínids. Des de la segona meitat del segle XIX s’han trobat nombrosos fòssils relacionats amb el llinatge humà que han proporcionat dades bàsiques sobre el procés d’hominització. Malauradament, aquestes restes són sovint fragmentàries i tenen moltes llacunes temporals.
– Els estudis paleogeogràfics i paleoecològics estan orientats a determinar amb la màxima precisió possible la zona on es van produir les principals fases de l’hominització i les condicions ecològiques en què van ocórrer. No hi ha dubte que el llinatge humà es va originar a l’Àfrica i que es van produir si més no dues migracions d’homínids que van colonitzar Euràsia. Cada cop és més clar que l’origen de la línia humana està relacionat amb importants canvis ambientals a l’Àfrica que van determinar una reducció de les zones boscoses i una expansió de les sabanes. L’aparició i l’evolució de la cultura humana proporcionen dades bàsiques per entendre de quina manera es relacionaven els antics homínids i com explotaven el medi ambient.
– L’antropologia molecular estudia les relacions dels éssers humans amb els altres primats actuals, mitjançant la comparació de les seqüències de les seves proteïnes o mitjançant les tècniques d’hibridació de l’ADN.
La història evolutiva de qualsevol espècie està continguda en els seus gens: els canvis en l’ADN són acumulatius i es van emmagatzemant, malgrat que la majoria de les mutacions són neutres des del punt de vista evolutiu. Comparant la composició de certes molècules (àcids nucleics i proteïnes) d’espècies diferents, és possible conèixer el seu grau de parentiu i establir arbres genealògics. S’admet que els canvis en el material genètic es produeixen a un ritme regular, de tal manera que és possible establir un «rellotge molecular» que permet valorar el temps transcorregut des de la divergència entre dues espècies: com més antiga sigui aquesta divergència, més diferents seran els gens de les molècules que codifiquen.
A partir de les dades moleculars s’ha pogut establir que el ximpanzé és l’espècie més propera a la humana: les diferències de l’ADN d’aquestes dues espècies són de l’1,2%; les diferències entre l’ésser humà i el goril·la són de l’1,4%, i les de l’ésser humài l’orangutan, del 2,4%. Les tècniques del rellotge molecular permeten calcular quan es van produir les divergències entre l’espècie humana i els altres grups de primats.
Amb relació a l’aparició de l’ésser humà modern, en la dècada de 1980 es van començar a publicar diferents dades moleculars. Així, comparant l’ADN dels mitocondris de les cèl·lules d’una variada mostra de representants de població humana actual, es va arribar a la conclusió que l’ésser humà modern es va originar a l’Àfrica en un període comprès entre fa 140000 i 290000 anys. Així mateix, l’ésser humà modern va iniciar la colonització de la resta del món ara fa uns 100000 anys (potser 180000). La primitiva població africana, uns milers d’individus, a partir de la qual s’han originat totes les varietats d’éssers humans actuals, ha rebut el nom d’«Eva mitocondrial». Aquesta hipòtesi de l’origen africà recent dels humans moderns no és acceptada de manera
unànime i els defensors de l’anomenat «model multiregional» sostenen que l’Homo erectus es va difondre per gran part de l’Àfrica i Euràsia fa aproximadament un milió d’anys, i que va desenvolupar característiques regionals (locals o racials) que han continuat fins a l’actualitat.
– Les datacions dels fòssils d’homínids i dels jaciments on es troben es poden fer directament en el material fòssil o bé de manera indirecta datant fòssils d’altres animals del jaciment, de l’estrat geològic o dels estrats de la seqüència. A més, la datació pot ser absoluta, si s’obté el temps d’antiguitat d’un fòssil, o bé relativa, si només indica que un fòssil és més o menys antic que una referència determinada.
En el cas de datacions absolutes, es donen en anys AP (abans del present) o, en anglès, BP (before present). El present es considera, per convenció, el 31 de desembre de 1950. Dos dels mètodes de datació més utilitzats són el del potassi/argó (K/Ar), que valora l’edat d’una roca segons la quantitat de potassi que s’ha transformat en argó, i el mètode del carboni 14, que valora la proporció entre els isòtops 12C i 14C continguts en un fòssil.
Un altre mètode de datació cada vegada més utilitzat en la datació de restes paleoantropològiques és el del paleomagnetisme, que es basa en els canvis que es produeixen en el camp magnètic terrestre (inversions de la polaritat).
Amb les dades de què es disposa actualment, es pot afirmar que les principals fases de l’origen i l’evolució del llinatge humà es van produir durant el pliocè (5,2-1,8 milions d’anys) i el plistocè (1,8 milions-12000 anys).
Ximpanzé 2n = 48 Bonobo 2n = 48 Ésser humà 2n = 46
Goril·la
Orangutan
Gibó
2n = 48
2n = 48
2n = 38-52
Cercopitecoïdeus
2n = 42-72
13.4. En quin procés geològic es basa el sistema de datació paleomagnètic?
13.5. A partir de les dades aportades per l’antropologia molecular, explica quina és l’espècie de primat més propera a la humana i indica quan es creu que es va produir la divergència entre aquestes dues espècies.
13.6. Durant quin període geològic es van produir les principals fases evolutives que han donat lloc al gènere Homo?
Dendograma que mostra les similituds genètiques deduïdes a partir de l’anàlisi de la hibridació dels ADN dels primats. Les xifres en negre indiquen el temps, en milions d’anys, en què s’hauria produït la separació entre les branques. Les xifres en blau (2n) indiquen el nombre de cromosomes.
Les primeres restes d’homínids que es coneixen tenen una antiguitat propera als 7 milions d’anys. Les troballes paleontològiques s’apropen cada cop més a les dades que els genetistes proposen per a la divergència entre el llinatge humà i el dels ximpanzés: de 5,8 a 7,1 milions d’anys.
No hi ha dubte que els homínids es van originar a l’Àfrica i que durant uns tres milions d’anys no van viure en cap altra zona.
Tenint en compte les troballes fòssils acceptades per la gran majoria dels paleoantropòlegs, s’han establert tres gèneres d’hominins, Ardipithecus, Australopithecus i Homo. De les nombroses espècies que han estat definides d’aquests gèneres, únicament la de l’Homo sapiens viu en l’actualitat.
L’Ardipithecus ramidus, trobat a Etiòpia, és l’homínid més antic segons la majoria dels especialistes; està datat en 4,4 milions d’anys i només se’n coneixen fragments d’ossos i de dents. Per l’estructura de les dents, s’assembla més a un ximpanzé, però les dades òssies permeten afirmar que era bípede. Els vegetals fossilitzats associats al gènere Ardipithecus indiquen que aquests homínids vivien en boscos i, per tant, que el bipedisme va ser anterior a l’adaptació a la vida a la sabana.
Esquelet de Lucy, un Australopithecus afarensis molt evolucionat.
A començament del segle XXI es van donar a conèixer diferents troballes d’homínids fòssils a Kenya i el Txad, a partir de les quals s’han establert nous gèneres i espècies.
L’any 2001 es van presentar tretze fòssils, pertanyents almenys a cinc individus, trobats a Tugen (Kenya), amb una antiguitat d’uns 6 milions d’anys. Amb aquests fòssils es va definir un nou gènere i una nova espècie d’homínids: Orrorin tugenensis (Orrorin significa, en la llengua nativa, ‘home original’). Si bé els individus de la nova espècie tenien unes dents semblants a les dels simis, l’estructura de les extremitats indica que eren bípedes.
El mateix any 2001 es van descobrir a la regió desèrtica de Djourab (Txad) un crani, dos fragments de la mandíbula inferior i tres dents aïllades d’un homínid que han servit per establir un nou gènere i una nova espècie: Sahelanthropus tchadensis. Anomenat Toumaï, que en la llengua nativa significa ‘esperança de vida’, la seva antiguitat és de 6 a 7 milions d’anys. Aquesta nova espècie ha estat considerada humana pels seus descobridors, però és molt propera a l’avantpassat comú amb el ximpanzé. Malgrat que tant Toumaï com Orrorin han estat inclosos en el llinatge humà, la seva posició filogenètica encara és discutida. Poc després de donar a conèixer Orrorin, paleoantropòlegs kenyans van presentar un grup de fòssils (un crani, fragments de maxil·lars, un os temporal i algunes dents) trobats prop del llac Turkana (Kenya), amb una antiguitat de 3,5 milions d’anys. Aquests fòssils els han inclòs en un nou gènere i una nova espècie: Kenyanthropus platyops (etimològicament, ‘home de Kenya de cara pla-
na’). Si bé la nova espècie va ser contemporània de la més antiga espècie d’Australopithecus, els seus individus tenien característiques que els apropaven a representants del gènere Homo
L’any 2003 es van descobrir en una cova de l’illa indonèsia de Flores restes, encara no ben fossilitzades, de com a mínim set individus amb l’estructura corporal pròpia dels homínids, però amb una talla i un cervell molt petits: l’alçada dels individus de Flores era d’un metre aproximadament, el pes era d’uns 25 kg i la capacitat craniana era de 380 cm3 (molt inferior a la de qualsevol població humana moderna, a la dels homínids fòssils coneguts i a la del ximpanzé). Els descobridors d’aquestes restes han proposat la creació d’una nova espècie d’homínid: Homo floresiensis, que de forma col·loquial es coneix com a hobbit.
El primer exemplar que es va trobar a Flores –amb un crani i bona part de l’esquelet ben conservats– té una antiguitat d’uns 18000 anys, mentre que l’edat de la resta dels exemplars oscil·la entre els 38000 i els 13000 anys. Van coincidir en el temps amb els humans moderns i amb els neandertals.
Associades a les restes de Flores s’han trobat eines de pedra força evolucionades i restes d’animals.
La interpretació de l’anomenat home de Flores ha estat motiu d’una intensa polèmica entre els paleoantropòlegs: segons els seus descobridors el nanisme i la microcefàlia de l’home de Flores són una adaptació a la insularitat, mentre que altres paleoantropòlegs sostenen que es tracta d’individus afectats per malformacions. Les anàlisis genètiques encara no han pogut determinar de forma clara amb quin grup d’homínids es pot relacionar l’home de Flores.
3.1. Australopithecus: un grup molt diversificat
Els Australopithecus van viure a l’Àfrica meridional i oriental durant més de tres milions d’anys (des de fa 4,2 milions d’anys fins fa 1 milió d’anys) i formen un grup d’homínids heterogeni. Aquests homínids eren de locomoció bípeda, vegetarians, tenien la cara grossa, un prognatisme clar, una capacitat craniana de 400 a 530 cm3, crestes nucals pronunciades, una alçada d’1 a 1,5 m i un dimorfisme sexual marcat. No hi ha proves que fabriquessin eines.
Fa uns 2,5 milions d’anys, el grup dels Australopithecus apareix escindit en dues tipologies diferents, una de gràcil i una altra de robusta. Les relacions filogenètiques entre els Australopithecus i el gènere Homo encara es discuteixen entre els especialistes. Els Australopithecus de tipologia robusta no poden ser els antecessors del gènere Homo, a causa de l’especialització nutritiva i del desenvolupament de determinades estructures òssies del crani que manquen en els individus del gènere Homo. En un primer moment, l’espècie Australopithecus africanus va ser considerada l’avantpassat del gènere Homo per la forma arrodonida del neurocrani; però aquella espècie tenia unes extremitats anteriors proporcionalment massa llargues amb relació a les cames. A partir dels descobriments de les restes fòssils de l’espècie Australopithecus afarensis, s’ha proposat aquesta espècie com a originària del llinatge humà.
El variat grup dels Australopithecus Tipologia gràcil Tipologia robusta
– Anamensis (4,2 a 3,9 milions d’anys). Rift Valley africà.
– Afarensis (3,9 a 3 milions d’anys). Rift Valley africà.
– Bahrelghazali (3,5 a 3 milions d’anys). Regió del Txad.
– Garhi (2,5 milions d’anys). Afar, Etiòpia.
– Africanus (2,8 a 2,4 milions d’anys). Àfrica meridional.
– Aethiopicus (2,7 a 1,9 milions d’anys). Rift Valley africà.
– Boisei (2,3 a 1,4 milions d’anys). Rift Valley africà.
– Robustus (1,9 a 1 milions d’anys). Àfrica meridional.
Les formes robustes eren de talla més gran que les gràcils i la morfologia de la cara i del crani era més robusta. A la part superior del crani, una marcada cresta sagital servia d’inserció als músculs del potent aparell masticatori, propi d’individus adaptats a una dieta rica en arrels i tubercles durs. Certs autors els inclouen en el grup dels Paranthropus.
a) Australopithecus afarensis.
b) Australopithecus robustus.
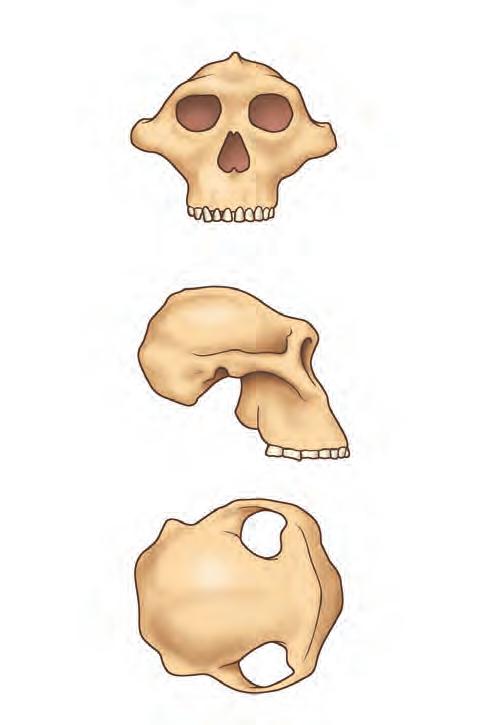
zigomàtic més robust
Els representants més antics del gènere Homo ja vivien a l’Àfrica, juntament amb espècies d’Australopithecus, fa com a mínim 2,4 milions d’anys. Eren uns homínids que tenien el cervell una mica més gros, que ja menjaven carn habitualment (eren omnívors) i que construïen eines per adaptar-se millor a les condicions ambientals. Els primers homínids que es van expandir per àmplies zones fora d’Àfrica van ser individus del gènere Homo.
Aquest gènere es diferencia dels Australopithecus en un seguit de tendències evolutives:
– El cap dels Homo és diferent del dels Australopithecus. La capacitat craniana dels Homo oscil·la entre 530 i 2000 cm3 a conseqüència d’un desenvolupament més gran del neurocrani (part del crani que allotja l’encèfal), amb un occipital més gran, un augment de la volta cranial i una reducció de la constricció postorbital.
– Hi ha una reducció relativa de l’esplancnocrani (part del crani relacionada amb l’inici de l’aparell digestiu), deguda a la clara reducció de l’aparell masticatori i la dentadura (reducció evident de la mida dels queixals), relacionada amb la nova dieta omnívora, que requereix un esforç masticatori més petit.
– El prognatisme disminueix.
– Es dóna un increment de la grandària corporal,amb una clara tendència a l’augment d’estatura (pel fet de tenir les cames més llargues) i de pes.
– Hi ha una disminució del dimorfisme sexual.
En els darrers vint anys hi ha hagut una gran quantitat de troballes de restes fòssils classificades com a gènere Homo i s’han establert diferents espècies que fan més difícil de comprendre l’arbre genealògic. Les troballes fòssils del gènere Homo s’agrupen en tres fases cronològiques:
– Fase habilis, amb una antiguitat d’entre 2,4 i 1,6milions d’anys. S’inclouen en aquesta fase les restes fòssils classificades com a Homo habilis i Homo rudolfensis.
– Fase erectus, amb una antiguitat d’1,8 a 0,2 milions d’anys. S’hi inclouen les restes classificades com a Homo ergaster, Homo erectus i Homo heidelbergensis.
– Fase sapiens, amb una antiguitat d’aproximadament 200000 anys i que inclou l’Homo neanderthalensis i l’Homo sapiens.
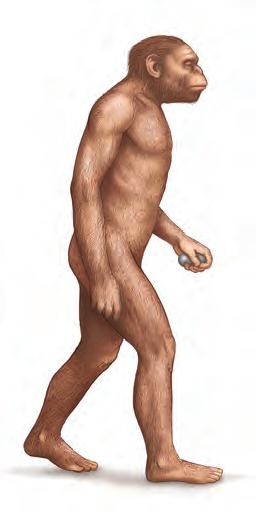
Reconstrucció d’Homo habilis.
4.1. Fase habilis
Els fòssils més antics del gènere Homo s’han trobat al Rift Valley i a l’Àfrica meridional. Aquests individus del gènere Homo van ser coetanis de les formes robustes d’Australopithecus. Actualment es distingeixen dues espècies: l’Homo rudolfensis (2,4-1,9 milions d’anys), amb una capacitat craniana de 750 cm3, trobat a Malawi i a Turkana (Kenya), i l’Homo habilis, trobat a l’Àfrica oriental i meridional, amb una capacitat craniana de 610 cm3
El terme habilis fa referència al fet que les evidències culturals més antigues conegudes fins ara, amb una antiguitat superior als 2 milions d’anys, s’han trobat associades a restes d’aquests homínids. Són eines de pedra tallades molt rudimentàriament que constitueixen l’anomenada cultura olduvaiana o mode I.
Talladors de pedra
Obtenció d’eines de tall a partir d’un nucli de pedra en la cultura olduvaiana.
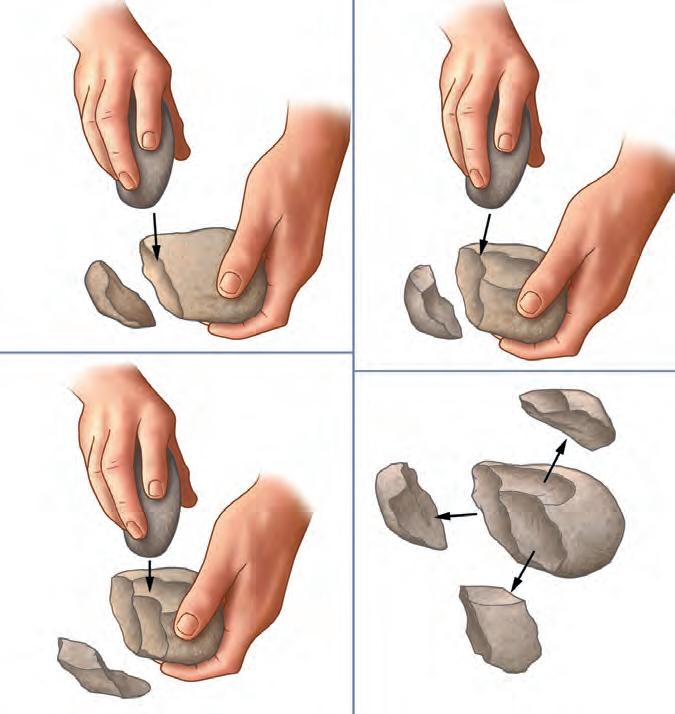
Els humans no som els únics animals que fem servir instruments. Per exemple els ximpanzés fan servir objectes naturals per realitzar certes funcions, com ara capturar tèrmits dels termiters o trencar fruits durs. No obstant això, aquests instruments estan ja prefigurats en la natura i no és necessari fer un gran esforç d’abstracció per representarse mentalment l’objecte que cal obtenir. Els humans som els únics primats que produïm realment instruments a partir d’una forma que únicament existeix a la imaginació.
La cultura humana més antiga coneguda és l’olduvaiana o mode I i correspon a individus de l’espècie Homo habilis. Els instruments que feien servir els Homo habilis consistien en còdols i fragments de roca tallats sense una forma estandarditzada, entre els quals es trobaven els anomenats choppers, unifacials (treballats per una cara), els choppingtools, bifacials (tallats per les dues cares), i les ascles sense retocar. El procés de construcció d’aquestes eines requeria pocs cops. Aquestes senzilles eines de pedra proporcionaven als seus constructors vores tallants.
Atapuerca: el poblament més antic d’Europa
La serra d’Atapuerca (Burgos) inclou un conjunt de suaus relleus que durant el cenozoic van experimentar una intensa carstificació. Les cavitats i galeries originades van ser omplertes de sediments plistocènics, en els quals es troba una extraordinària acumulació de fòssils de nombroses espècies d’animals, milers de restes fòssils d’homínids i una gran quantitat d’eines construïdes per aquests.
L’excavació sistemàtica dels diferents jaciments d’Atapuerca es va iniciar l’any 1978, i es creu que els treballs paleontològics i arqueològics duraran unes quantes dècades.
Els jaciments d’Atapuerca són, fins ara i per la seva extraordinària riquesa en fòssils d’homínids i en indústries humanes, l’enclavament que conserva el registre fòssil d’Europa més complet, la qual cosa permet estudiar l’evolució dels ecosistemes i dels éssers humans al llarg del darrer milió d’anys.
A partir de les restes trobades en el jaciment Gran Dolina, s’ha proposat l’existència d’una nova espècie d’homínids, l’ Homo antecessor (‘home pioner’ o ‘explorador’), amb una antiguitat superior als 780000 anys, que es podria incloure entre els més antics pobladors d’Europa. Les restes trobades són desenes de fragments ossis que corresponen a sis individus. A partir d’uns quants fragments es va poder reconstruir parcialment el crani d’un individu jove, un adolescent d’uns catorze anys, les característiques del qual van servir per definir la nova espècie.
Les restes fòssils dels sis individus de Gran Dolina mostraven senyals inequívocs d’haver estat consumits per altres humans: aquests europeus tan antics eren, doncs, caníbals.
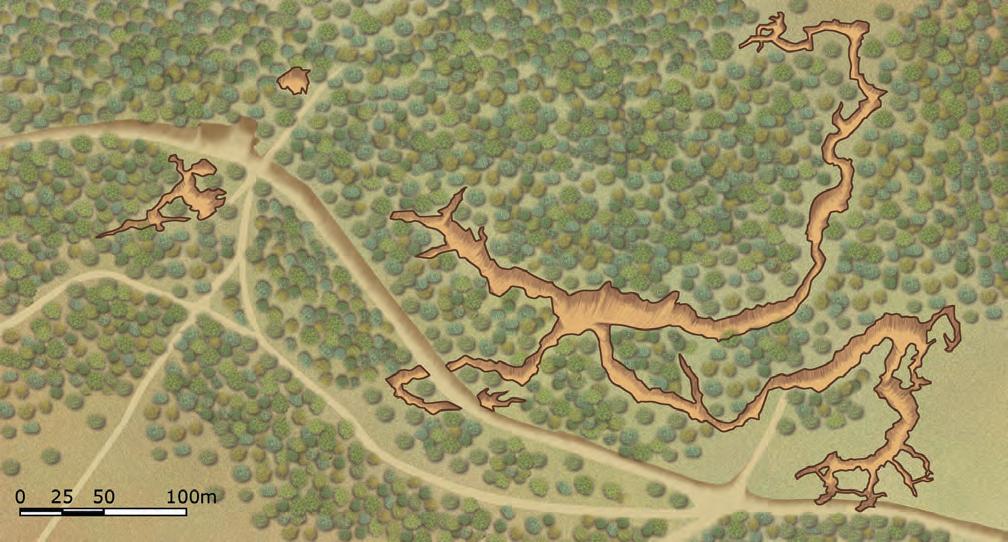
a) i b) Reconstrucció del crani i de l’aspecte d’un Homo antecessor d’uns 14 anys d’edat. c) Crani trobat al jaciment Sima de los Huesos, amb una antiguitat d’uns 300000 anys.
Segons les interpretacions que fa l’equip d’investigadors d’Atapuerca, l’ Homo ergaster, la primitiva espècie africana, es va escindir en dues línies: una d’asiàtica (Homo erectus) i una altra d’africana (Homo antecessor). Fa més d’un milió d’anys, alguns individus d’aquesta espècie van abandonar l’Àfrica, es van expandir per Europa i Àsia i van donar lloc als neandertals, mentre que la població que va restar a l’Àfrica va donar lloc a l’ Homo sapiens. L’home pioner d’Atapuerca era alt (feia entre 1,65 i 1,75 m), tenia una complexió forta, una capacitat craniana de 1000 cm3 i un crani i unes dents de característiques arcaiques, però tenia una cara força semblant a la de l’ésser humà modern.
Gran Dolina Sima de los Huesos Galería El Elefante
En aquest jaciment es té un registre continu de més d’un milió d’anys. L’any 1997, en el nivell 6, que té una antiguitat de 780 000 anys, es va trobar el crani d’un individu d’uns 14 anys, a partir del qual s’ha establert l’espècie Homo antecessor, els individus de la qual són considerats els avantpassats comuns dels llinatges heidelbergensis, neandertal i sapiens
En el jaciment Gran Dolina s’ha trobat una indústria lítica molt antiga. L’ocupació d’homínids caçadors-recol·lectors que capturaven grans mamífers es pot remuntar a un miliód’anys enrere.
En aquesta galeria cega s’ha trobat la concentració més gran de restes humanes del plistocè mitjà: més de tres mil ossos pertanyents a 32 individus d’una mateixa població biològica, dels dos sexes i de diferents edats, amb predomini d’individus adolescents. L’antiguitat d’aquestes restes és d’uns 300000 anys i es creu que pertanyen a individus classificats com a preneandertals.
Les causes de la mort d’aquesta població no són clares i l’acumulació de les seves restes no es descarta que pogués ser deguda a una pràctica funerària.
Aquest jaciment, situat al costat del de Gran Dolina, inclou uns setze metres de sediments que engloben un lapse temporal que va des de fa uns 780000 anys fins fa 150000 anys.
S’hi han descobert grans quantitats de fòssils d’animals i indústries humanes de sílex que mostren marques evidents d’haver estat utilitzades per a l’esquarterament d’animals.
Inclou una secció d’uns quinze metres d’altura de sediments càrstics.
En aquest jaciment, a més de nombroses restes fòssils d’animals (cavalls, bòvids, bisons, cérvols gegants, etc.), s’han trobat les evidències més antigues d’ocupació humana d’Atapuerca.
L’any 2007 es va trobar una mandíbula humana associada a 32 fragments de sílex tallats, datats en 1200000 anys. Són els fòssils del llinatge humà més antics trobats fins ara a Europa.
4.2. Fase erectus
El primer fòssil atribuït a la fase erectus va ser trobat l’any 1891 a Java pel metge holandès E. Dubois. Se li va aplicar el terme erectus perquè, en aquella època, era l’homínid bípede més antic conegut. Posteriorment s’ha pogut establir que el bipedisme és una característica que ja presentaven homínids anteriors.
Els erectus van ser els primers homínids que van sortir d’Àfrica i que es van expandir per tot el planeta.
Espècies incloses en la fase erectus
Homo ergaster (ergaster significa ‘treballador’)
• 1,8-1,4 milions d’anys.
• Capacitat craniana: 800-900 cm3
• D’origen africà, van fer la primera sortida d’Homo cap a Europa.
• Són autors de les cultures de l’olduvaià –o mode I– i l’acheulià –o mode II–, que inclou ascles tallades per les dues cares i destrals.
• 1,8-0,2 milions d’anys.
• Capacitat craniana: 775-1300 cm3
• La majoria de les restes conegudes són asiàtiques.
• 0,6-0,2 milions d’anys.
• Capacitat craniana: 850-1400 cm3
• Les seves restes s’han trobat a l’Àfrica i a Europa.
Els homínids del grup erectus tenien una estructura corporal molt semblant a la de l’ésser humà modern, amb una alçada compresa entre 1,55 i 1,65 m i un pes d’uns 55 kg. La capacitat craniana mitjana era d’uns 1000 cm3, el crani era allargat i el front, deprimit amb arcs supraorbitals ben marcats. Mostraven un prognatisme clar amb unes mandíbules fortes i unes dents força voluminoses.
A les espècies incloses en la fase dels erectus se’ls atribueix importants progressos, com ara la colonització de les terres temperades de fora d’Àfrica, la utilització sistemàtica del foc, la fabricació d’eines bifacials, la construcció dels primers campaments i la pràctica de les primeres activitats rituals, com ara l’antropofàgia i alguns rituals funeraris.
Nombrosos indicis permeten afirmar que els erectus eren bons caçadors de grans animals.
La utilització del foc va ser un esdeveniment fonamental en la vida d’aquests homínids: els va protegir dels depredadors i del fred (van poder viure en medis propers a zones cobertes de gel); els va permetre estovar i transformar els aliments (van poder reduir l’esforç masticatori, fet que va repercutir en la reducció de les mandíbules i de la musculatura masticatòria) i els va permetre perllongar les activitats que requerien llum, cosa que afavoria l’activitat tècnica i la relació social. Les datacions més antigues que es fan de la utilització del foc són de fa 400000-450000 anys.
d’Homo
Australopithecus afarensis
Homo
Australopithecus bahrelghazali
Paranthropus boisei
Homo ergaster
Australopithecus anamensis
Paranthropus aethiopicus
Paranthropus boisei
Homo habilis / rudolfensis
Australopithecus afarensis
Australopithecus africanus Homo habilis?
Paranthropus robustus
Hadar
Konso
Llac Turkana
Omo
Awash Mitjà
Olduvai
Laetoli
Llac Malawi
Makapansgat
Sterkfontein
Australopithecus africanus
Swartkrans
Ardipithecus ramidus
Australopithecus afarensis
Paranthropus aethiopicus
Paranthropus boisei Homo habilis
Homo habilis
Paranthropus boisei Homo ergaster / erectus
Homo?
Paranthropus
Australopithecus africanus
Paranthropus robustus Homo ergaster
Homo ergaster 0 2000 km
Principals jaciments africans on s’han trobat homínids fòssils.
En la fase sapiens s’inclouen tots els éssers humans actuals i diversos grups fòssils. Dins de l’evolució recent (els últims 130000 anys) del gènere Homo, es distingeixen dos grups clarament diferents: els neandertals i els Homo sapiens «moderns». Per alguns paleoantropòlegs, els neandertals són una subespècie de l’Homo sapiens (H. sapiens neanderthalensis), mentre que d’altres opinen que són una espècie diferent (Homo neanderthalensis) que va evolucionar paral·lelament a l’espècie Homo sapiens i es va extingir fa uns 30000 anys.
Les indústries lítiques
Mode I o olduvaià:
1) i 2) chopping-tool (còdol tallat bifacial) vist desde dues perspectives diferents; 3) un poliedre.
Mode II o acheulià:
1) i 2) dues perspectives d’una destral de mà; 3) un fenedor.
Mode III o mosterià: 1) raspador; 2) burí; 3) punta leval·loisiana.
Mode IV del paleolític superior: 1) raspador distal; 2) punta en fulla de llorer del solutrià; 3) atzagaia d’os.
El fet de considerar els neandertals com una espècie independent de l’espècie humana actual implica assumir que són el resultat d’un procés evolutiu independent, tot i que va començar a partir d’un avantpassat comú. Com a resultat d’aquesta evolució separada i divergent, els neandertals i els humans moderns som molt més diferents que les diverses poblacions humanes actuals (esquimals, aborígens australians o pigmeus, per exemple).
Malgrat que els neandertals són el resultat d’una evolució que es va desenvolupar a Europa, en algun moment van sortir d’aquest continent i es van expandir per l’Àsia central i el Pròxim Orient.
La morfologia cranial neandertal era molt diferent de la dels humans moderns i es caracteritzava pels trets següents:
– Presentaven una gran capacitat craniana, que sovint superava la mitjana de l’ésser humà modern, amb un neurocrani baix i llarg i un occipital prominent.
– Tenien el front inclinat, amb un aplanament de la volta craniana i uns arcs supraorbitals molt desenvolupats.
– La cara era alta, massissa i prominent, amb una cavitat nasal gran (característiques que han estat interpretades com una adaptació al clima fred) i una mucosa nasal extensa, fet que afavoria l’escalfament i l’humitejament de l’aire inspirat. El rostre dels neandertals és únic per la seva prominència nasobucal i per l’absència de mentó (barbeta).
Els neandertals tenien un físic corpulent, amb músculs forts, pit voluminós i una alçada aproximada d’1,7 m els mascles i 1,6 m les femelles. Utilitzaven el foc de manera habitual, eren experts caçadors i van desenvolupar la indústria lítica coneguda com a mosteriana.
Eren caçadors de preses grans i petites, estaven especialitzats a viure en els climes freds i utilitzaven pells per abrigar-se. Sovint buscaven refugi a les coves, però vivien a l’exterior, en tendes fetes de pells.
Hi ha indicis que fan pensar que els neandertals enterraven els morts i que feien ofrenes florals. Indubtablement practicaven l’antropofàgiai complexos rituals funeraris. A excepció d’alguns objectes d’ornament personal, no es coneix cap altra manifestació artística atribuïble als neandertals.
Segons l’opinió més generalitzada, sembla que els neandertals no es van barrejar genèticament amb les poblacions dels humans moderns. La major part de les restes de neandertals a Europa i al Pròxim Orient tenen una antiguitat d’entre 130000 i 30000 anys.
Els Homo sapiens, humans anatòmicament moderns
Els fòssils més antics d’humans anatòmicament moderns, amb una antiguitat d’uns 130000 anys, s’han trobat a l’Àfrica. A Palestina, els fòssils tenen una antiguitat d’uns 100000 anys; a l’Europa central i occidental, l’antiguitat és d’uns 35000 anys, i a la Xina, d’uns 25000 anys.
Les tendències evolutives pròpies dels humans moderns són les següents:
–una capacitat craniana alta, amb 1350 cm3 de mitjana; –unes línies d’inserció muscular del crani menys marcades; –el front vertical i bombat; –uns arcs supraorbitals poc desenvolupats, que no formen un tot continu;
–una regió occipital arrodonida amb l’àrea de la nuca relativament petita;
–una tendència a l’increment de l’alçada de la volta craniana i a fer que l’amplada màxima del neurocrani es trobi entre els parietals; – la mandíbula i les dents relativament petites; – la presència de mentó; – una menor robustesa dels ossos de les extremitats.
Amb relació a l’origen de l’Homo sapiens s’han proposat dues hipòtesis:
– La primera, anomenada teoria de la continuïtat regional (o del canelobre), sosté que la fase erectus és una variant molt antiga d’Homo sapiens. Segons aquesta teoria, en els darrers dos milions d’anys d’història del llinatge humà es va produir una evolució de poblacions interrelacionades en una xarxa de contactes en totes les regions del món antic, de manera que, malgrat les adaptacions locals, totes les poblacions van mantenir intercanvis genètics. Segons això, els caràcters més moderns van aparèixer en diferents moments i indrets, i es van difondre independentment.
–La segona hipòtesi, la més acceptada, és l’anomenada teoria de l’origen africà recent (o de l’arca de Noè). Sosté que totes les poblacions humanes actuals tenen l’origen en una població africana que va viure en un període comprès entre 200000 i 100000 anys enrere, la qual va colonitzar tot el planeta en una segona gran migració. A més de les dades paleontològiques, la hipòtesi de l’origen africà es basa en l’estudi de l’ADN mitocondrial en poblacions actuals.
Hipòtesi en canelobre (multiregional, continuïtat)
Esquema que mostra les dues hipòtesis que es discuteixen actualment sobre l’origen de l’ésser humà modern.
Hipòtesi de l’arca de Noè (substitució)
Àfrica Àsia oriental Pròxim Orient Europa Àfrica Àsia oriental Pròxim Orient Europa
400000 anys
La classificació zoològica que s’utilitza per ordenar les diferents espècies (Homo sapiens, Australopithecus afarensis, Australopithecus robustus, etc.) agrupa les més properes en gèneres (Homo, Australopithecus…). Els gèneres propers s’agrupen en famílies, el nom de les quals es reconeix per la terminació en –ínids (com ara homínids). Les famílies es poden dividir en subfamílies, el nom de les quals es reconeix pel sufix –inins (com per exemple hominins), o agrupar en superfamílies, acabades en –oïdeus (com ara hominoïdeus), i en ordres.
13.7. A més del gènere Homo, quins altres gèneres s’inclouen en el llinatge humà?
13.8. Quins són els homínids les restes dels quals es troben fora del continent africà?
13.9. La utilització sistemàtica del foc va ser un extraordinari avenç cultural en l’hominització. A partir de les dades de què es disposa actualment, indica quins van ser els primers homínids que van fer servir el foc i quina antiguitat tenen els primers indicis clars d’aquesta utilització.
13.10. Explica quins avantatges va representar el domini del foc per als humans que el van començar a fer servir.
13.11. L’augment de la capacitat craniana ha estat una de les característiques bàsiques de l’hominització. Quin es considera que és el límit inferior de la capacitat craniana del gènere Homo?
13.12. Explica el significat dels termes habilis, ergaster, erectus, antecessor i sapiens que es fan servir per designar les diferents espècies del gènere Homo.
13.13. Quins van ser els homínids que van fabricar les eines més antigues que es coneixen i que s’engloben dins l’anomenada cultura olduvaiana?
13.14. Els neandertals són els homínids més propers a l’ésser humà modern. Explica com eren, on van viure i en quin interval cultural.
13.15. Quines són les dues hipòtesis que es consideren amb relació a l’origen de l’Homo sapiens?Quines diferències presenten? En què es basen?
13.16. Els jaciments de la serralada d’Atapuerca (Burgos, Castella i Lleó) han proporcionat un nombre molt important de fòssils humans. Explica quines espècies o fases hi són representades i quin període temporal abasten.
13.17. Copia els mots de sota i relaciona els del primer grup amb els del segon grup:
Primer grup:
Prognatisme, ergaster, antecessor, habilis, cultura olduvaiana, antropofàgia, mentó.
Segon grup:
Choppers, barbeta, canibalisme, prominència nasobucal, cultura acheuliana, pioner o explorador, primers artesans.
13.18. Ordena cronològicament les espècies d’homínids fòssils següents. Després, copia el quadre que hi ha a continuació, que en resumeix les característiques, i completa’l.
Homo antecessor, Australopithecus boisei, Homo neanderthalensis, Australopithecus africanus, Homo ergaster, Homo habilis i Homo heidelbergensis.
13.19. En la columna estratigràfica del peu d’aquesta pàgina es representa l’antiguitat de les restes d’animals, l’antiguitat de les restes humanes i l’antiguitat de les restes d’indústries humanes que s’han trobat al jaciment Gran Dolina, a la serralada d’Atapuerca. Observa-la amb atenció i fes les activitats que es proposen a continuació:
a)Descriu aquest jaciment i enumera les característiques principals de l’Homo antecessor.
b)Quin devia ser l’origen d’aquesta nova espècie del gènere Homo?
c)Quina relació té l’Homo antecessor amb els neandertals i amb els éssers humans anatòmicament moderns?
13.20. Descriu les transformacions principals, pel que fa a la forma de vida, que s’han esdevingut des que els pòngids i els homínids es van separar fins a l’aparició de l’Homo sapiens. Tingues en compte que a l’hora d’escriure la teva redacció has de fer servir els conceptes següents:
alliberament de la mà, increment de la capacitat craniana, intel·ligència, locomoció bípeda, règim herbívor, règim omnívor, selecció natural, ús d’instruments i vida arborícola.
13.21. En la il·lustració de sota, es representen els cranis i les reconstruccions del cap d’un neandertal i d’un ésser humà modern. Explica les principals diferències que hi ha entre ambdues espècies pel que fa al cap.
13.22. La posició erecta permanent i la locomoció bípeda van implicar una reordenació de l’esquelet dels homínids i uns canvis notables en altres aparells i funcions del cos. En la il·lustració de sota es representa un quadrúpede, en concret el goril·la, i un ésser
humà. Explica quins canvis va representar el bipedisme per a cada un dels punts següents: – el cap i la seva articulació amb la columna vertebral; – l’orifici occipital o foramen magnum; – la columna vertebral; – les extremitats; – el sentit de la vista; – la recepció de la radiació solar i la regulació de la temperatura corporal.
13.23. Escriu una breu descripció per a cada un dels termes següents, els quals es fan servir quan es descriuen els cranis dels homínids: volta craniana, prognatisme, esplancnocrani, cresta sagital, neurocrani, arc supraorbital, forat occipital o foramen magnum.
13.24. Relaciona cada nom del primer grup amb el corresponent del segon grup i del tercer grup: Primer grup: mode I, mode II, mode III, mode IV. Segon grup: cultura acheuliana, cultura solutriana o altres cultures pròpies del paleolític superior, cultura mosteriana, cultura olduvaiana.
Tercer grup: fase erectus, fase habilis, neandertals, sapiens moderns.
Curvatura
Curvatura
13.25. Digues si les afirmacions següents són certes o falses:
a)Els primats es van originar fa uns cinquanta milions d’anys, durant l’eocè.
b)El gènere Ardipithecus inclou homínids bípedes que vivien als boscos durant el pliocè.
c)La família de primats hilobàtids inclou el gibó, el mandril i el siamang.
d)Els primats nadius (no introduïts per l’ésser humà) es troben a tots els continents, tret de l’Amèrica del Sud.
e)L’espècie més antiga del gènere Homo és l’Homo ergaster.
f)Tots els grans pòngids actuals són africans.
g)La vista és l’òrgan dels sentits predominant en els primats.
h)La fauna australiana de primats inclou únicament representants del subordre dels estrepsirins.
i)La fauna dels primats de Madagascar no inclou cap representant dels primats superiors (simis o antropoides).
j)En el procés de l’hominització, el bipedisme va ser anterior al creixement i desenvolupament del cervell.
k)Els Australopithecus van viure a gairebé tot el planeta des de fa 4,2 milions d’anys fins fa 1 milió d’anys.
l)La capacitat craniana dels individus del gènere Homo varia entre 700 i 2000 cm3 .
1. En l’esquema d’aquesta columna es representen els quatre grans simis que viuen en l’actualitat: l’ésser humà, el ximpanzé, el goril·la i l’orangutan. Les fletxes indiquen les diferències genètiques aproximades que separen aquests grans simis (en percentatge de diferència en l’ADN).
Explica en què consisteixen les tècniques d’antropologia molecular que permeten conèixer les similituds i les diferències entre els éssers humans i les altres espècies de simis vives. Què és un rellotge biològic?
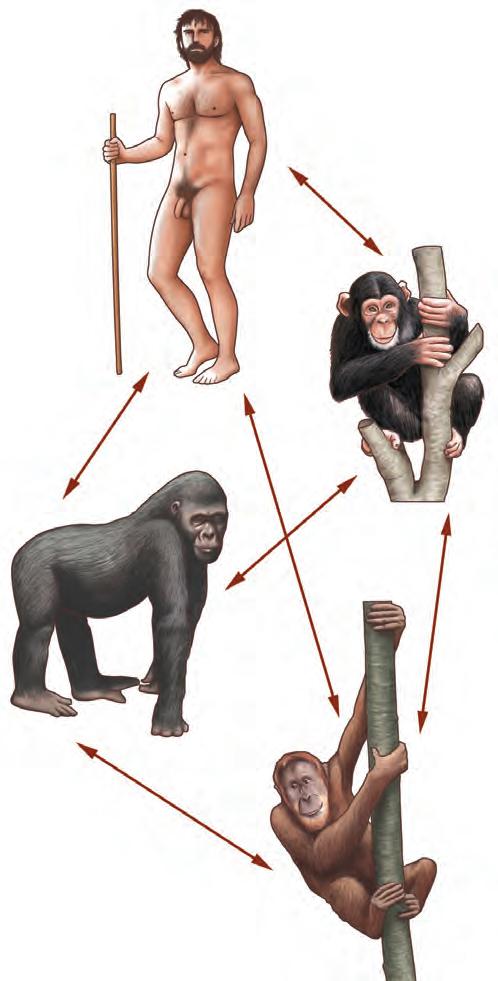
A partir de la informació de la unitat i de les consultes que calguin, respon a les preguntes següents sobre aquests simis:
a) Quin és el seu nom científic i el seu nom comú?
b)Quina és la capacitat craniana aproximada de cadascun?
c)Quina n’és la distribució geogràfica?
d)En quin tipus d’hàbitat viu cadascun?
e)Quin tipus de locomoció té cadascun?
f)Quina és la situació ecològica (expansió o perill d’extinció) en què es troba cadascun d’aquests grans simis?
2. «Pel gran públic, les idees de Darwin –escrivien recentment els paleontòlegs J. L. Arsuaga i I. Martínez– es resumeixen en el fet que l’espècie humana prové del mico. Poques vegades en la història de la ciència s’ha simplificat i distorsionat més una teoria tan rica i complexa.»
a) Per què no és cert afirmar que l’ésser humà prové dels ximpanzés, els goril·les i altres micos?
b) Què afirmava Darwin en realitat?
c) L’arbre de sota mostra el nombre de mutacions que separa el gen de la proteïna X en els diferents primats. Per què podem afirmar que l’arbre s’adiu més amb el pensament de Charles R. Darwin que no pas l’afirmació que «l’ésser humà prové del mico»?
d) Quina mena d’arbre és aquest? Com és el cladograma d’aquests organismes? Coincideixen tots dos arbres?
3. Copia el quadre següent i completa’l:
Espècie
Australopithecus africanus
Homo habilis
Homo erectus
Homo neanderthalensis
Homo sapiens
Capacitat craniana Distribució temporal Distribució geogràfica
4. En l’esquema següent es representen diferents característiques de diversos primats. Fes un informe escrit que resumeixi les principals dades aportades pel gràfic i relaciona aquestes dades amb el procés d’hominització.
Període prenatal (setmanes)
Durada mitjana de la vida
Període reproductiu femení
Període infantil
Període juvenil
Període adult
Avenços culturals
5. L’any 2003 es van descobrir a l’illa indonèsia de Flores unes restes de fòssils humans atribuïts a una nova espècie d’homínid, l’Homo floresiensis (a), amb una antiguitat d’entre 38000 i 13000 anys. Feia poc menys d’un metre d’alçada, degué pesar uns 25 kg i tenia el cervell similar al dels humans actuals, si bé proporcionalment més petit (de poc menys de 400 cm3).
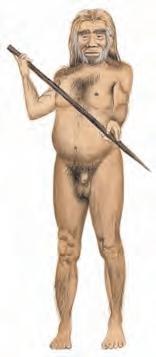
a) L’home de Flores va conviure amb l’Homo sapiens, dels quals hi ha moltes restes fòssils a l’illa de Flores. Tanmateix, els científics no esperen trobar fòssils dels possibles encreuaments entre les dues formes. Explica per què creus que no en trobaran.
b) L’Homo floresiensis no era l’únic organisme «petit» de l’illa. S’hi han trobat també restes d’un elefant ben menut (b). El fet de tenir una mida petita no és infreqüent entre algunes espècies endèmiques
d’illes. Els científics argumenten que pot ser una bona adaptació a un ambient on no hi ha depredadors i en què els recursos són limitats. Argumenta –des d’un punt de vista evolutiu– com aquestes espècies poden haver arribat a aquesta adaptació.
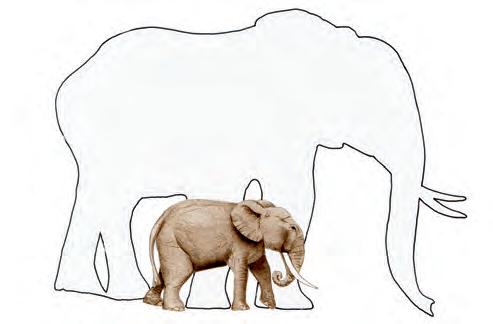
c) L’elefant africà i l’elefant asiàtic (c) van evolucionar, en dos continents diferents, a partir d’un antecessor comú. Explica com es poden haver originat dues espècies diferents a partir d’un únic avantpassat.
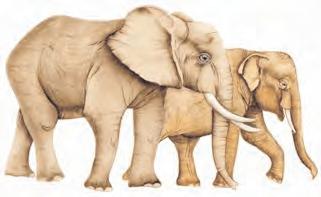
A Adenina
ADN o DNA Àcid desoxiribonucleic
ADNasa Desoxiribonucleasa
ADNc ADNcomplementari
ADNmt ADNmitocondrial
AMP, ADP, ATP Monofosfat, difosfat i trifosfat d’adenosina
AMPc AMPcíclic
ARN Àcid ribonucleic
ARNasa Ribonucleasa
ARNm Àcid ribonucleic missatger
ARNr Àcid ribonucleic ribosòmic
ARNt Àcid ribonucleicde transferència
C Citosina
CMP, CDP, CTP Monofosfat, difosfat i trifosfat de citidina
CoA Coenzim A
FAD Dinucleòtid de flavina i adenina
FADH2 Forma reduïda del FAD
fMet N-formil-metionina
G Guanina
GMP, GDP, GTP Monofosfat, difosfat i trifosfat de guanosina
NAD+ Dinucleòtid d’adenina i nicotinamida
NADH Forma reduïda del NAD
NADP+ Fosfat del dinucleòtid d’adenina i nicotinamida
NADPH Forma reduïda del NADP
Pi Fosfat (ortofosfat) inorgànic
PEP Fosfoenol pirúvic
PPi Pirofosfat inorgànic
T Timina
TMP, TDP, TTT Monofosfat, difosfat i trifosfat de timidina
U Uracil
UMP, UDP, UTP Monofosfat, difosfat i trifosfat d’uridina
1a posició 2a posició 3a posició (extrem 5’) UCAG (extrem 3’)
GACUPhe Ser Tyr Cys U
Phe Ser Tyr Cys C
Leu Ser STOPSTOP A
Leu Ser STOP Trp G
Leu Pro His Arg U
Leu Pro His Arg C
Leu Pro Gln Arg A
Leu Pro Gln Arg G
Ile Thr Asn Ser U
Ile Thr Asn Ser C
Ile Thr Lys Arg A
Met Thr Lys Arg G
Val Ala Asp Gly U
Val Ala Asp Gly C
Val Ala Glu Gly A
Val Ala Glu Gly G
TEMPS FANEROZOICS (PALEOZOIC, MESOZOIC I CENOZOIC)
PROTEROZOIC
PRECAMBRIÀ
Condicions oxibiòtiques.
Primers metazous. (S’ha trobat fauna fòssil a Ediacara, sud d’Austràlia.)
Reproducció sexual.
Cèl·lules eucariotes.
Algues cianofícies.
Protoalgues. Primers indicis d’activitat fotosintètica.
Primers indicis d’activitat orgànica: estromatòlits.
HOLOCÈ
PLISTOCÈ
PLIOCÈ
MIOCÈ
OLIGOCÈ
EOCÈ
PALEOCÈ
Aparició del gènere Homo.
Gran desenvolupament dels mamífers.
Important extinció en massa.
Gran expansió biològica.
Primeres aus.
TRIÀSIC
CATARQUEÀ ARQUEÀ JURÀSSIC
Atmosferaanòxica, senseoxigen. Roquessedimentàries mésantiguesconegudes.
DEVONIÀ
Aparició de les angiospermes.
Gran expansió biològica.
Aparició dels mamífers.
La més gran extinció coneguda.
Gran desenvolupament de la vegetació.
Primers rèptils.
Extinció en massa.
Primers amfibis.
Colonització del medi continental.
Primeres plantes terrestres.
Extinció en massa.
Primers vertebrats: agnats (ostracoderms i ciclòstoms).
Explosió vital (Big Bang biològic) amb gran diversificació de la biosfera.
Primers animals amb closca protectora.
Primers cordats.
ANIMALS
Eucariotes pluricel·lulars heteròtrofs
PLANTES
Eucariotes pluricel·lulars autòtrofs
INVERTEBRATS I VERTEBRATS
Símbols i abreviatures Codons dels aminoàcids
A AlaAlanina GCAGCCGCGGCU
C CysCisteïna UGCUGU
D Asp Àcid aspàrticGACGAU
E Glu Àcid glutàmicGAAGAG
F Phe Fenilalanina UUCUUU
G Gly Glicina GGAGGCGGGGGU
H HisHistidinaCACCAU
CRIPTÒGAMES I FANERÒGAMES (sense flors) (amb flors)
FONGS
Eucariotes unicel·lulars o pluricel·lulars heteròtrofs
LLEVATS, FLORIDURES I BOLETS
I Ile Isoleucina AUAAUCAUU
K LysLisina AAAAAG
L Leu LeucinaUUAUUGCUACUCCUGCUU
M Met Metionina AUG
N Asn Asparagina AACAAU
P Pro Prolina CCACCCCCGCCU
Q Gln Glutamina CAACAG
R Arg Arginina AGAAGGCGACGCCGGCGU
S Ser Serina AGCAGUUCAUCCUCGUCU
T Thr Treonina ACAACCACGACU
V Val ValinaGUAGUCGUGGUU
W Trp Triptòfan UGG
Y Tyr Tirosina UACUAU
PROTOCTISTS
Eucariotes unicel·lulars o multicel·lulars, autòtrofs o heteròtrofs
MONERES
Procariotes unicel·lulars
PROTOZOUS I ALGUES
BACTERISICIANOFÍCIES
A abissal 15
acetil pirúvic 285 acetil-CoA 280, 285, 287 àcid acetilsalicílic 262
àcid araquidònic 254, 262 àcid ascòrbic 224 àcid biliar 260 àcid fosfatídic 258
àcid glucurònic 239 àcid gras 250, 251 àcid gras essencial (EFA) 251, 254 àcid hialurònic 246
àcid linoleic 254 àcid linolènic 254 àcid muràmic 246
àcid nucleic 11, 363 àcid omega-3 254 àcid omega-6 254 àcid pirúvic 218 àcid prostanoic 262 àcid-D-galacturònic 241 acidesa de l’oli 251 acil-CoA 291 acilglicèrid 250, 253, 255 actualisme 342, 344 adenilat 217 adipòcit 250 ADP 216 aerobi 159, 220 agent evolutiu 397 agent infecciós 172 agent patogen 172 aglicon 246 aigua 19, 100 aïllament 418, 421, 423, 424 al·lèrgia 196, 201 al·lergogen 201 al·lopàtrica 418 albedo 104 alcaloide 54 aldosa 237 alga 11
amfipàtic 251, 256 amilopectina 244, 245 amilosa 244, 245 aminoàcid 295, 327, 363 aminosucre 239 ammonit 375 amonificació 319 amplitud tèrmica 16 anabolisme 214, 323, 325 anabolitzant 215 anàdrom 18 anaerobi 46, 159, 220 anemocòria 29 anisogàmia 11 anòmer 239 antibiosi 53, 181 antibiòtic 53, 181, 182, 416 anticòs 194, 203 antigen 194, 199, 203 antisèpsia 184 apoenzim 223 apoptosi 203 aposematisme 55 araquidònic 252 Archaeopteryx lithographica 375, 376 arqueà 371 arqueobacteri 10, 162 Arrhenius, Svante 364 asèpsia 184 aspartam 244 Australopithecus 378 autoimmunitat 196 autonomia reflexa 54 autopoesi 213 autòtrof 10, 11, 216
B bacil 157, 158 bacil de Koch 158, 185 bacteri 10, 50, 98, 306, 319 bactericida 184 bacterièmia 184 bacteriòfag 165, 166 Baer, Karl E. von 418 batial 15 beina 161 belemnit 375 bentos 15, 85 biocatalitzador 221 biocenosi 13 biodiversitat 9, 125 bioma 78, 84 biomassa 61, 78 biomolècula 236 bioquímica 235 biosfera 8 biosíntesi 214 biosíntesi del glicogen 325 biosíntesi dels aminoàcids 327 biotecnologia 136 biòtop 13
Biston betularia 405, 431 blàstula 11 blat 132 bosc caducifoli nemoral 84 bosc de ribera 89 bosc monsònic 84 bosc nemoral 88 briòfit 11 brolla 90 Buchner, Eduard 222 Buen, Odón de 346 bulb 16
C
Cacyreus marshalli 151 cadena de connexió 311 cadena respiratòria 280, 288 cadena tròfica 59 caducifoli 16, 92, 93 calciferol 224 call 137 calor d’evaporació 100 calor específica 100 Calvin, Melvin 331 cambrià 373, 374 càpsida 164 capsòmer 164 càpsula de Petri 246 carbohidrat 236 carboni 97 carboni anomèric 239 carbonífer 374 carbonització 381 carboxisoma 161 carnívor 45 carotè 261 carotenoide 309 catabolisme 214, 287, 291, 292, 294, 296, catàdrom 18 catalassa 233 catalitzador 221 categoria taxonòmica 425 Caventou, Joseph 330 cefalina 258 cel·lobiosa 242 cèl·lula 11, 154, 203 cel·lulosa 49, 245 cenozoic 371, 373, 378 ceramida 259 cerebròsid 259 cetosa 237 Chimaera monstruosa 8
cianobacteri 99, 161, 306 cianocobalamina 224 cianofícia 10, 161, 306 ciclamats 244 cicle biogeoquímic 97 cicle de Calvin 315 cicle de Krebs 280, 285 cicle de l’àcid cítric 285 cicle de l’àcid tricarboxílic 285 cicle de l’aigua 100 cicle de nitrogen 319 cicle del carboni 97 cicle del fòsfor 100 cicle del nitrogen 98 cicle del sofre 99 cicle fenològic 14 cicle lisogènic 166 cicle lític 166 cicle vital (cicle lític) dels virus 168 citoquina 203 cladisme 353 cladística 425 cladograma 353 clenbuterol 215 clímax 78, 79 clina 399 clon 139 clonació 139 clorofil·la 42, 308, 309 cloròfit 11 cloroplast 306, 307 coc 157, 158 coenzim 223 coevolució 408 cofactor 223 colesterol 253, 260 colònia 79 combustible fòssil 98 comensalisme 47, 48 Comín, Pasqual 436 competència 47, 83 comunitat 13 condroïtina 237, 246 congelació 16 conjugació 161 consanguinitat 401 constant de Planck 309 consumidor 59 contagiós 174 Cook, James 223 Copèrnic, Nicolau 338 cortisol 260 creacionisme 338 cretaci 375 Crick, Francis 364 cripsi 54 criptocrom 309 criptògama 114 criptozoic 371 Cuvier, Georges 40
D
D-arabinosa 238 Darwin, Charles Robert 9, 341, 342, 345, 358 demografia 79 dengue 173 densitat 100 depredador 48 depressió per consanguinitat 402 deriva genètica 397, 400 desaminació 215, 294 descàrrega elèctrica 54 descomponedor 44, 59 desert 84 desertització 105 desnitrificació 99 desoxi-D-ribosa 238
desoxiribosa 239 desoxisucre 239 determinant antigènic 199 devonià 374 dextrina 245 dextrogir 238
D-fructosa 238 D-galactosa 238 D-galactosamina 241 D-glucosa 238 diabetis 247 diacilglicèrid 255, 255 diagrama alimentari 46, 70 diapausa 17 dihidroesfingosina 259 dihidroxiacetona 236 dinàmica de les poblacions 82 diòxid de carboni 41 diplococ 158 diploide 11 direccional 403 disacàrid 242 disjunció boreoalpina 25 disponibilitat d’aigua 13 disruptiu 403 diterpens 261 D-mannosa 238 Dobzhansky, Theodosius 347, 394 dorífora 124 drepanocitosi 405 D-ribosa 238 D-xilosa 238
E ecologia 8 ecosistema 13 ectoparàsit 52 edulcorant 243 efecte d’hivernacle 97, 100 efecte fundador 401 efipis 29 Eldredge, Niles 348 electròlit 218 embrió 11 empeltar 132 emulsionant 258 enantiomorf 237 encreuament experimental 133 endèmic 174, 184 endemisme 26 endoparàsit 52 energia 102 energia d’activació 221 energia endosomàtica 102 energia exosomàtica 102 energia lliure 216 energia solar 105 enginyeria genètica 137 enzim 214, 221, 225 eó 371 epibiosi 51 epidèmia 174, 184 epidemiologia 184 epífita 51 epítop 199, 203 epizoòtia 174 equilibrador 403 era paleozoica 373 eritropoetina (EPO) 215 Eschirichia coli 157, 416 esfingolípid 250, 259 esfingomielina 259 esfingosina 259 especiació 399, 418, 421 espècie 23, 24, 26, 27, 47, 75, 347, 419, 425 espectre d’absorció 309 espermatòfit 332
espina 53 espinar 89 espiril 157, 158 espiroqueta 158 espora 11, 160 esporangi 118 esporogoni 118 esporulació 160 estafilococ 158 estatge 85, 88 esteàric 252 estepa 84 èster fosfòric 239 esterà 260 esterasa 291 estereoisòmer 237 esterificació 256 esterilització 209 esteroide 250, 260 esterol 260 estoma 19 estradiol 260 estratègia K i R 75 estreptococ 158 estroma 307 estromatòlit 162 eucariota 10 evapotranspiració 40 evolució biològica 9, 365 evolució iterativa 418 evolució molecular 365 evolució nuclear 365 evolució paral·lela 418 evolució protobiològica 365 evolucionisme 338, 339 extinció 14, 125, 383 F factor abiòtic 13 factor ambiental 12 factor limitador 100 família 425 fanerògama 113 fanerozoic 371, 373 fase biosintètica 308 fase fotoquímica 307 favisme 405, 407, 408 fecundació 19 fenologia 14, 309 fenotip 132 feòfit 11 fermentació 282, 283, 384, feromona 152 fibra vegetal 247 ficobilisoma 161 filogènia 354, 425 filoquinona 224 fílum 11, 425 fímbria 157 fissió binària 155 fitocrom 14, 309 fitòfag 45 fitol 308 fitoplàncton 15, 86 fixació biològica 99 fixació industrial 99 fixisme 338 flagel 155 Fleming, Alexander 172, 181 floema 11 fluctuació 82 flux cíclic 313 flux d’electrons 311 flux d’energia 63, 102 flux gènic 397, 399 Folch, Ramon 66, 96, 149 fong 10, 11 foraminífer 378 forèsia 51 fosfoglicèrid 250, 256 fòsfor 100 fosforilació fotosintètica 313 fosforilació oxidativa 216, 280, 288 fòssil 27, 378, 380 fossilització 381
fòtica 15 fotó 310 fotoautòtrof 159, 220 fotofosforilació 313 fotoheteròtrof 159, 220 fotòlisi de l’aigua 312 fotoperíode 14 fotorespiració 317 fotosíntesi 41, 42, 220, 306 fotosistema 310 freqüència gènica 394 freqüència genotípica 396 furanosa 239
G galactosamina 239 garriga 90 gemma 41 gemmació 303 gen 138 generació espontània 390 gènere 425 genètica de poblacions 394 genotip 132 geòfit 95 Gilbert, Walter 368 gliceraldehid 237 glicerina 255 glicogen 237, 245 glicogènesi 323 glucagó 247 glucèmia 247 glúcid 235 glucoàcid 239 glucoalcohol 239 glucoesfingolípid 259 glucolípid 236, 246, 250, 259 glucòlisi 215, 280 gluconeogènesi 323 glucoproteïna 236, 246 glucosa 42, 236 glucosamina 239
Gould, Stephen J. 353 gramnegatiu 155 grampositiu 155 granívor 46 granulòcit 197 graptòlit 374 greix 250, 291, 355 greix neutre 253 grup aldehid 236 grup cetona 236
H hadeà 371 haplodiploïdia 347 helicoïdal 165
Helmont, Jan Baptista van 40, 57, 330 hematòfag 52 hemicel·lulosa 246 hemiparàsit 42, 53 hemoglobina falciforme 406 hemoglobinopatia 405 heparina 246 herbívor 45, 46 heretabilitat 133 heteropolisacàrid 236, 246 heterosi 133, 404 heteròsid 236, 246 heteròtrof 10, 11, 43, 45, 216 hexosa 238 hexosana 236 hibernació 17 híbrid estèril 424 híbrid inviable 424 hibridació 132, 133 hidrat de carboni 236 hidrocòria 29, 30 hidròfil 251 hidrolasa 226 hidròlisi 256 hifa 11
Hill, Robert 311, 331 hiperparasitisme 52
hipogeu 19 histocompatibilitat 203 holocè 378 holoenzim 223 homeoterm 17 Homo erectus 378 Homo habilis 378 Homo sapiens 378 homocromia 54 homologia 352 homopolisacàrid 236 Hooker, Joseph D. 344 hoste 52, 172 Humboldt, Alexander von 87
Iicnofòssil 382 icosaèdric 165 ictiosaure 375 immunitat 194, 196 immunodeficiència 196 immunogenicitat 184 immunoglobulina 199, 203, 246 immunologia 194 índex de creixement 80 índex de diversitat 78 índex de mortalitat 80 índex de natalitat 79 infecció 172, 180, 185 infectivitat 185 inhibició competitiva 225 inhibició no competitiva 225 inhibidor 225 inhibidor enzimàtic 223 insaturat 251 insecte xilòfag 247 insecticida 159 insulina 247 interval de pH 222 Iridomyrmex humilis 123 isòmer 237 isomerasa 226 isoprè 261 isoprenoide 250, 261 Ivanoski, Dimitri 163
J Jacob, François 338 Jay Gould, Stephen 348 juràssic 375
K Kimura, Motoo 347 Koch, Robert 172 Krakatau 74 Kuhn, Thomas S. 192
L lactosa 242 landa 90 laterita 69 Lavoisier, Antoine Laurent 331 lecitina 258 leptocèfal 18 leucòcit 197, 203 levogir 238 liasa 226 licopodi 374 licor de Fehling 232 ligasa o sintetasa 226 limfòcit 194, 197, 203 Linepithema humilis 123 Linné, Carl von 338, 426 linoleic 252 lipasa 256, 262, 291 lípid 235, 250, 291 lipòfil 251 lipoproteïna 262 liposoluble 223 lleguminosa 319 llei biogenètica fonamental 351 llei de Dollo 395 llei de hardy-Weinberg 395, 396 llei de l’herència dels caràcters adquirits 341
llei de l’ús i del no-ús 341 llufa 31 llum 13, 14
Lyell, Charles 342, 343, 345
M macròfag 203 madrèpora 50 malaltia contagiosa 180 malaltia de les vaques boges (EEB) 136, 190 malaltia humana provocada per bacteris 177
malaltia humana provocada per virus 176
malaltia immunoproliferativa 196 malaltia infecciosa 170, 180 malaltia priònica 193 malaltia transmissible 180 malària 130, 186 maltosa 242 manipulació genètica 138 mannitol 243 màquia 88, 89 marcador cel·lular 200 Margulis, Lynn 368 mastòcit 203 matèria inorgànica 41 matèria orgànica 41 mecanisme d’aïllament 421, 424 mecanisme de defensa 53 mecanisme de dispersió 29 mecanisme de transmissió 175, 177 Mège-Mouriès, Hyppolyte 253 melanisme industrial 404 membrana plasmàtica 155 memòria immunològica 195 Mendel 348 mentol 261 mesòfil 316 mesosoma 155, 156 mesozoic 371, 373 metabolisme 214, 215, 294 metabòlit 214 miceli 11 micoriza 43, 50 micosi 182, 185 microbiologia 172 micropaleontologia 382 micròtom 118 midó 237, 244 mielina 259 migració 17, 399 Miller, Stanley L. 366, 367 mimetisme 56 mineralització 381 miocè 378 mitocondri 285 molècula organogènica 365 monera 10 Monet, cavaller de Lamarck, JeanBaptiste de 341, 359, 362 monoacilglicèrid 255, 255 monòcit 197 monosacàrid 236, 237 monoterpens 261 mucopolisacàrid 246 mucoproteïna 246 mureïna 246 mutarotació 239 mutualisme 47, 48
N necròfag 45 nèctar 243 nectarívora 46 nècton 15, 85, 86 neodarwinisme 347 niacina 224 nif 138 nínxol ecològic 47 nitratoreductasa 319 nitrificació 319 nitritoreductasa 319 nitrobacteri 319
nitrogenasa 319 nitrosoma 319 nivell tròfic 59 nòdul radical 50 Northrop, John H. 222 nucleòtid 363 nutrició autòtrofa 41
O oleic 252 oligocè 378 oligosacàrid 236, 242 omnívor 45 oocè 378 ordovicià 374 òrgan 11, 352 organisme vector 174 origen de les espècies, L’ 9, 246, 342 origen de l’home, L’ 343, 403 Oró, Joan 367 oxidació 214 oxidoreductasa 226
P paleoantropologia 382 paleobiogeografia 382 paleobotànica 382 paleocè 378 paleoclimatologia 382 paleoecologia 382 paleoicnologia 382 paleontologia 378 paleozoic 371, 373, 374 paleozoologia 382 palinologia 382 palmític 252 paludisme 130, 173, 186 panmixi 396 panspèrmia 364, 368 paràsit 44, 45 parasitisme 52 paret cel·lular 155 paret vegetal 247
Pasteur, Louis 172, 183, 184, 362 pasteurització 183 patogen 52, 174 pectina 246
Pelletier, Pierre 330 penicil·lina 44, 181 pentosa 238 pentosana 236 peptidoglicà 246 perennifoli 92, 93 període d’incubació 174, 180 permià 374 pH òptim 222 pigment accessori 309 piranosa 239 piràmide d’edat 80 piràmide d’energia 61 piràmide de biomasses 61 piràmide de nombres 61 piràmide tròfica 60 piridoxina 224 Pirineu 34, 69, 108 piruvat 218 plana abissal 15 plàncton 15, 85, 86 planta 10, 11 planta C3 316 planta C4 316 planta CAM 318 planta crassa o suculenta 19 planta de dia curt 15 planta de dia llarg 15 planta lleguminosa 50 planta no vascular 11 planta transgènica 147 plasmidi 154, 155 plasmòcit o cèl·lula plasmàtica 197 Plasmodium falciparum 186 pliocè 378 plistocè 378 pluja àcida 99 pluviïsilva tropical 84
població 12, 79 població familiar 79 població gregària 79 Podarcis lilfordi 20 Podarcis muralis 20 Podarcis pytusensis 20 poiquiloterm 17 polihidroxialdehid 236 polihidroxicetona 236 polimorfisme 404 poliploïdia 397, 399 polisacàrid 236, 244 politerpens 261 portador sa 177, 185 postzigòtic 422 precambrià 371 predació 47, 48 predador 48 pressió 13 pressió de mutació 397 prezigòtic 422 Priestley, Joseph 314, 330 prió 185, 190 probiòtic 136 procariota 10 producció 62 producció fotosintètica 321 producció primària 62 producció secundària 63 profilaxi 185 progesterona 260 prostaglandina 250, 262 proteïna 363 proterozoic 371 protist 10 protoctist 10, 11, 372 protoplaneta 369 protoplast 137 protozou 11 prova d’evolució 350 prova de Fehling 271 prova del lugol 272
Prusiner, Stanley B. 190 ptialina 232
Q quantum d’energia lumínica 310 quimioautòtrof 159, 220 quimioheteròtrof 159, 220 quimiosíntesi 220 quimioteràpia 174 quiralitat 237 quitina 237, 245, 247
R raça 425 radiació adaptativa 418 raïm de moro 122 rapinyaire 66, 67 raquitisme 260 reacció endergònica 216 reacció exergònica 216 reacció fosca 308 reacció lumínica 307 Redi, Francesco 362 reducció 214 refinatge 263 regla d’Allen 27, 28, 430 regla de Bergmann 27, 28, 430 regla de Rensch 32 regne 10, 425 regressió 76 relació interespecífica 47 relació tròfica 59 Remsen, Ira 244 reservori 186 respiració 45 respiració aeròbica 220 respiració celular 280 respiració cel·lular aeròbica 282 resposta immunitària cel·lular 198 resposta immunitària humoral 198 retinol 224 retroinhibició 225 retrotranscriptasa 170
retrovirus 170
Rhizobium 98, 138 riboflavina 224 rizoma 16 roureda 89 rudista 375 RuDP-carboxilasa 315 Russel Wallace, Alfred 342
S saba 49 sabana 84 sabó 256 sacarímetre 302 sacarina 244 sacarosa 242 Sachs, Julius von 330 sal biliar 291 salinitat 13 salmó 18 salze 40, 57, 314 sàmares 29 saponificació 256 sapròfit 44 saturat 251
Saussurre, Nicolas Théodore de 330 Schrödinger, Erwin 236 selecció artificial 133, 344, 394 selecció clonal 199 selecció de parentiu 347 selecció disruptiva 404 selecció equilibradora 404 selecció natural 12, 342, 383, 397, 403, 405 semidesert 84
Sénébier, Jean 330 sequera 16 seroteràpia 196 sèssil 85 silurià 374 simbiont 49 simbiosi 47, 49 simpàtrica 418 sincronització de la gestació 136 síndrome de Creutzfeldt-Jakob 136 sistema HLA 220 sistema immunològic 194 sistemàtica 425 societat 79 sofre 99 soja 146 sorbitol 243 sorus 118
Spallanzani, Lazzaro 362 subespècie 425 substrat 214 successió ecològica 74 successió primària 76 successió secundària 76
Suess, Eduard 7
Sumner, James B. 222 Szent-Györgyi, Albert 224
T taigà 84, 88 talassèmia 407 talús continental 15 tamarigar 89 tanatocresi 51 Tansley, Arthur G. 13 taumatina 244 tàxon 425 taxonomia cladística 425 tecnologia de l’ADN 138 teixit 11 teixit adipós 250 temperatura 13, 16, 222 temperatura òptima 222 teoria de l’evolució 338 teoria dels equilibris puntuats 348 teoria neutralista 347 teoria sintètica 347 teràpia 186 terpens 250, 261 terra baixa 88
terra primitiva 370 testosterona 215, 260 tetraterpens 261 tiamina 224 tija 41 tilacoide 307 tipus 425 tipus d’anticossos 199 tocoferol 224 tortuga gegant de les illes Galápagos 419 toxina 95, 186 transaminació 215, 294 transcriptasa inversa 170 transducció 161 transecte 34 transferasa 226 transferència electrònica 288 transformació 161 transmissió indirecta 178 transport electrònic 280, 288 traqueòfit 11 trealosa 242 treball aeròbic 282 treball anaeròbic 282 triacilglicèrid 255, 255 triàsic 375 triestearina 255 triglicèrid 255 trilobit 373 trisacàrid 242 tundra 84
U uniformitarisme 344 Urey, Harold C. 367
V vacunació 174, 195 vàgil 85 variació fenotípica 133 variació genotípica 133 vector 178, 186 vegetació 84, 90 via anabòlica 219 via catabòlica 219 via de Hatch-Slack 316, 317 via metabòlica 214 vibrió 157, 158 VIH 170 vil·là 29 virió 165, 166 virus 11, 163 vitamina 223, 224 vitamina D 260 vitamina hidrosoluble 223 Vernadsky, Vladimir I. 110
W Weinberg, Wilhelm 396 Wendell, M. Stanley 222 Whitaker, Robert 10 Wilson, E. 436 Wilson, Edward O. 8, 435
X xantofil·la 261, 309 xarxa tròfica 60 xeròfit 19 xilema 11 xilòfag 46
Z zigot 11 zona abissal 15 zona batial 15 zona fòtica 14, 15 zona nerítica 15 zona oceànica 15 zona pilífera 40 zoocòria 29, 31 zoòfag 45 zooplàncton 68, 86 zootècnia 134 zooxantel·la 50
ANGUITA, FRANCISCO: Origen e historia de la Tierra. Alcorcón, Rueda, 1988.
BOSCHDELA TRINXERIA, CARLES: L’hereu Noradell. Barcelona, Península, 1991.
DARWIN, CHARLES: L’origen de les espècies. Barcelona, Edicions 62, 1983.
DARWIN, CHARLES: L’origen de l’home. Edicions Científiques Catalanes, 1964.
FOLCH, RAMON (dir.): Biosfera. Barcelona, Enciclopèdia Catalana (10 vol.).
FOLCH, RAMON: Comprendre la natura. Barcelona, Barcino, 1990.
FOLCH, RAMON: Història Natural dels Països Catalans. Barcelona, Enciclopèdia Catalana, 1985-1992.
GOMIS, CELS: Zoologia popular catalana. Barcelona, Biblioteca Folklòrica del Centre Excursionista de Catalunya (CEC), 1910.
GOULD, STEPHEN JAY: El libro de la vida. Barcelona, Editorial Crítica, 1999.
HALL, D. iK. RAO: Fotosíntesis. Barcelona, Omega, 1984.
JACOB, FRANÇOIS: La lógica de lo viviente. Barcelona, Laia, 1977.
LAMARCK, JEAN-BAPTISTE: Filosofía zoológica. Barcelona, Alta Fulla, 1986.
LÓPEZ PIÑERO, JOSÉ M.: Diccionario histórico de la ciencia moderna en España Barcelona, Edicions 62, 1983.
LURIA, SALVATORE: 36 Lecciones de Biología. Madrid, Blume, 1979.
MARGALEF, RAMON: Ecologia. Barcelona, Servei del Medi Ambient, 1985.
MARGALEF, RAMON: Planeta azul, planeta verde. Barcelona, Labor, 1992.
MARGULIS, LYNN iDORION SAGAN: Què és la vida? Barcelona, Proa, 1997.
PATTERSON, COLIN: La evolución. Barcelona, Fontalba, 1985.
PRUSINER, STANLEY B.: «El prió en la patologia», dins Investigación y ciencia (març de 1995).
SCHRÖDINGER, ERWIN: ¿Qué es la vida? Barcelona, Tusquets, 1984.
SCHUMACHER, WALTER: Tratado de Botánica. Barcelona, Omega, 1989.
VERNADSKY, VLADIMIR IVANOVITX: La biosfera. Madrid, Visor, 1997.
ISBN978-84-489-2452-2