
Matèria de modalitat
Matèria de modalitat Ciències i Tecnologia
Ciències i Tecnologia
1r BATXILLERAT
Matèria de modalitat
Matèria de modalitat Ciències i Tecnologia
Ciències i Tecnologia
1r BATXILLERAT
Unitat 1. Els microscopis i la teoria cel·lular
1. La teoria cel·lular
7
.8
2. Els microscopis i l’estudi de la cèl·lula . . . .11
3. L’organització procariota i eucariota
4. Activitats finals .
5. Activitats d’avaluació .
6. Pràctiques de laboratori .
.18
.21
.22
.25
Unitat 2. La cèl·lula eucariota . . . . . 31
1. La cèl·lula eucariota .
2. Les membranes cel·lulars
3. El citoplasma: sistemes de sosteniment i de transport
7. El desenvolupament en els vegetals . . . . .163
8. La coordinació reproductora . .
9. Activitats finals . . . . .
10. Activitats d’avaluació . .
11. Pràctiques de laboratori
.166
.172
.173
.175
Unitat 6. La química de la vida 181
1. La diversitat i la unitat dels organismes . .182
2. Els nivells d’organització .
3. Els bioelements . . .
.32
.35
.41
4. El citoplasma: orgànuls funcionals . . . . . . .44
5. L’origen de la cèl·lula eucariota
6. Activitats finals .
7. Activitats d’avaluació
8. Pràctiques de laboratori
Unitat 3. El nucli i la divisió cel·lular
1. El nucli cel·lular
2. El cicle cel·lular
3. La divisió cel·lular. La mitosi
4. La meiosi
5. El càncer
6. Activitats finals
7. Activitats d’avaluació
8. Pràctiques de laboratori
.183
.184
4. Les biomolècules o principis immediats . .187
5. L’aigua . .
6. Les sals minerals
.47
50
.54
.56
63
.64
.69
.70
.73
.78
.84
.86
.87
Unitat 4. La coordinaciócel·lular . . . 89
1. La comunicació cel·lular .
2. Les hormones: missatgers químics
3. El sistema hipotàlem-hipòfisi
4. La neurona . .
5. El sistema immunològic
6. Activitats finals . .
7. Activitats d’avaluació .
.189
.190
7. L’estat fisicoquímic de la matèria viva . . . .191
8.Els tipus d’enllaços entre les biomolècules194
9. Activitats finals .
10. Activitats d’avaluació . . .
11. Pràctiques de laboratori
Unitat 7. Les proteïnes .
1. La composició i les característiques de les proteïnes
2. Els aminoàcids . .
3. L’enllaç peptídic
.197
.198
.199
203
.204
.205
.208
4. Funcions biològiques de les proteïnes . . . . .211
5. L’estructura de les proteïnes
6. Els enzims: catalitzadors biològics .
7. Activitats finals
8. Activitats d’avaluació
9. Pràctiques de laboratori .
.90
.93
.95
.101
.110
.126
.128
Unitat 5. La reproducció. Els cicles biològics 131
1. Els gèrmens .
2. La reproducció asexual
3. La reproducció sexual
4. Els cicles biològics
5. Els processos embriològics .
.132
.133
.136
.148
.154
6. El desenvolupament en els animals . . . . . .155
.215
.220
.222
.224
.225
Unitat 8. La base molecular de l’herència: els àcids nucleics 237
1. Els àcids nucleics . . . . .
2. Nucleòsids i nucleòtids
3. L’ADN o àcid desoxiribonucleic
4. L’ARN o àcid ribonucleic
5. Activitats finals . . .
6.Activitats d’avaluació
.238
.239
.243
.252
.256
.260
Unitat 9. Les lleis de l’herència . . . . 263
1. El naixement de la genètica . .
2. El treball de Mendel . . .
3. Genotip i fenotip
4. La genètica i la teoria cromosòmica de l’herència .
5. Determinació del sexe . . .
6. Lligament
. .264
.265
.285
.286
7. L’expressió dels gens . . .
8. Activitats finals .
9. Activitats d’avaluació .
10. Pràctiques de laboratori
Unitat 10. L’expressió del material hereditari: de l’ADN a les proteïnes.
.287
.289
.293
.295
Les mutacions 303
1. L’ADN és el material hereditari . . . . . . . . .304
2. Expressió del material genètic . . . . . . . . . . .309
3. La traducció o síntesi de proteïnes . . . . . . .317
4. Les mutacions .
5. Regulació de l’expressió dels gens .
6. Més enllà del genoma: l’epigenètica .
7. Activitats finals
8. Activitats d’avaluació
Unitat 11. El genoma humà
1. Salut, malaltia i genètica .
.327
.332
.335
.338
.341
345
.346
2. El genoma humà . . .
3. Els marcadors biològics . . .
4. Gens, cromosomes i mutacions . .
5. Genètica i càncer . .
6. Activitats finals . . .
7. Activitats d’avaluació .
Unitat 12. L’enginyeria genètica: biotecnologia i salut . .
1. L’enginyeria genètica . . . .
.353
.358
.369
373
.374
2. La tecnologia de l’ADN recombinant . . . .377
3. Enginyeria genètica i biotecnologia . . .
4. Productes biotecnològics i organismes transgènics .
5. Activitats finals .
6. Activitats d’avaluació .
Apèndix
.381
.399
.400
Pàgina inicial: pàgina que presenta els diversos continguts de la unitat.
Introducció: text breu que contextualitza el que s’explicarà en la unitat.
Esquema: índex amb els punts principals tractats en la unitat.
El contingut de la unitat està estructurat en apartats i subapartats numerats que permeten una millor ordenació de l’estudi.
Apartats: numerats i amb títol indicatiu.
Citació: cada unitat està encapçalada per un fragment d’un text d’alguna personalitat.
Fotografies: documentades i d’absolut rigor.
Documents: textos que amplien el contingut.
Taules i esquemes: elements gràfics que ajuden a la comprensió del text.
Paraules en negreta: paraules que identifiquen els conceptes que cal retenir. www: indicació per marcar que en l’adreça www.espaibarcanova.cat hi ha enllaços per completar la informació.
Quadres de text: informació addicional.
Dibuixos: elements gràfics que ajuden a la comprensió del text.
Activitats: cada apartat presenta una proposta d’activitats,identificades amb el número d’unitat i el número correlatiu d’activitat.
El tancament de la unitat consta dels elements següents:
Activitats finals: activitats per treballar alguns dels aspectes tractats en la unitat. La numeració és consecutiva amb la resta d’activitats de la unitat.
Activitats d’avaluació: activitats per avaluar l’assoliment dels continguts de la unitat.
Recorda: textos breus que reforcen conceptes importants.
Pràctiques de laboratori: activitats experimentals per fer al laboratori.
1.La teoria cel·lular
2.Els microscopis i l’estudi de la cèl·lula
3.L’organització procariota i eucariota
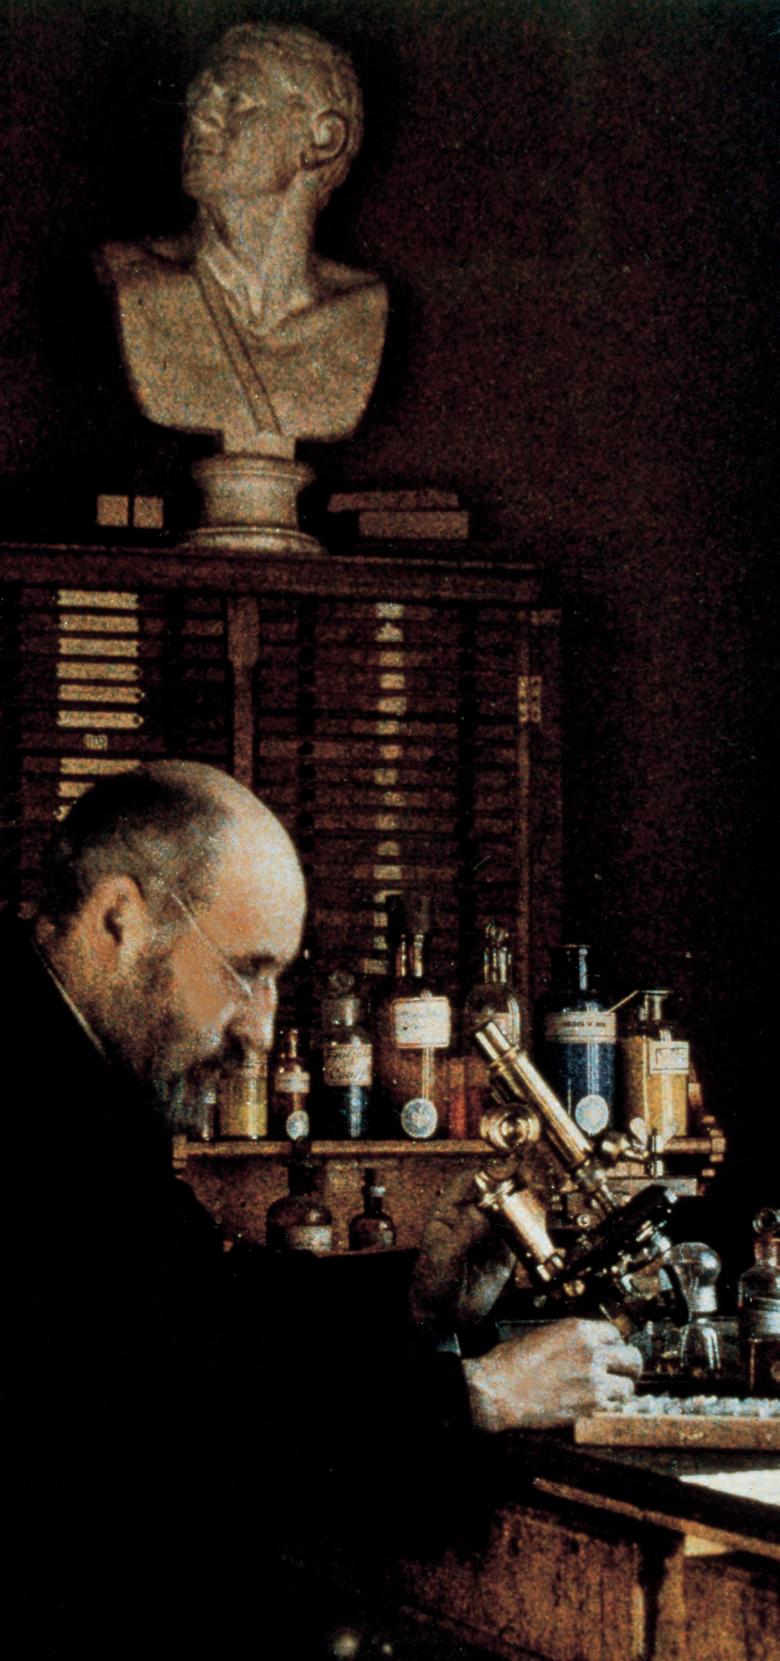
Santiago Ramón y Cajal (1852-1934).
El descobriment de les cèl·lules, la indagació de les seves parts fonamentals, i més endavant el convenciment de la importància de les cèl·lules en la composició i el funcionament dels éssers vius, són part d’un procés de segles que va culminar en el segle XIX. Més endavant, ja ben entrat el segle XX, noves tecnologies van fer possible l’accés als detalls de la ultraestructura cel·lular (o estructura més íntima). Aquesta llarga història és paral·lela a la història dels microscopis.
Vaig agafar un tros de suro, […] amb un ganivet en vaig llescar una làmina ben prima […] i vaig poder veure perfectament que estava perforat i proveït de porus, com una bresca d’abelles, […] que inclouen i constitueixen les cèl·lules.
La cèl·lula és la unitat estructural i funcional dels éssers vius. Aquesta és la senzilla formulació de la teoria cel·lular, que des que va ser enunciada, en el transcurs del segle XIX, constitueix una de les teories bàsiques de la biologia.
La primera formulació precisa de la teoria cel·lular la van fer simultàniament els alemanys Matthias Jakob Schleiden, en el camp de la botànica, i Theodor Schwann, en el camp de la zoologia (1839). No obstant això, tots dos, van sostenir idees errònies sobre l’origen de les cèl·lules. De fet, va caldre l’aportació d’un tercer naturalista alemany, el metge Rudolf Virchow, per desenvolupar i completar la teoria cel·lular de Schleiden i Schwann. Virchow va sintetitzar la seva teoria l’any 1858, amb el famós aforisme «omnia cellula ex cellula», és a dir, «tota cèl·lula s’origina a partir d’una altra de preexistent».
El microscopi. Dades cronològiques
Cap al 50 dC
L’escriptor i polític Luci A. Sèneca, de Còrdova, utilitza per llegir uns globus convexos plens d’aigua. Aquesta pràctica es continua fent servir fins a l’Edat Mitjana, època en què s’utilitza per miniar.
Cap al 1000
Ibn al-Haytam realitza els primers estudis de l’òptica de l’ull humà i de les lents.
Cap al 1285
Es fan les primeres ulleres per a prèsbites i hipermetrops.
Cap al 1575
Es fan les primeres ulleres per a miops.
Cap al 1590
Data probable de la construcció del primer microscopi compost (o microscopi amb dos sistemes de lents: ocular i objectiu), amb un poder de magnificació real d’uns 10 augments. És difícil de dir qui va ser el primer fabricant d’aquests objectes, ja que molts precursors en prepararen el camí. La ullera de llarga vista construïda per Galileu, per exemple, podia haver donat pas a un microscopi.
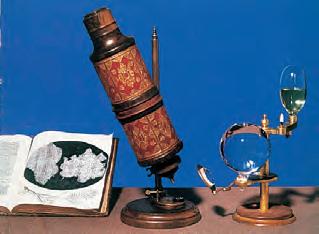
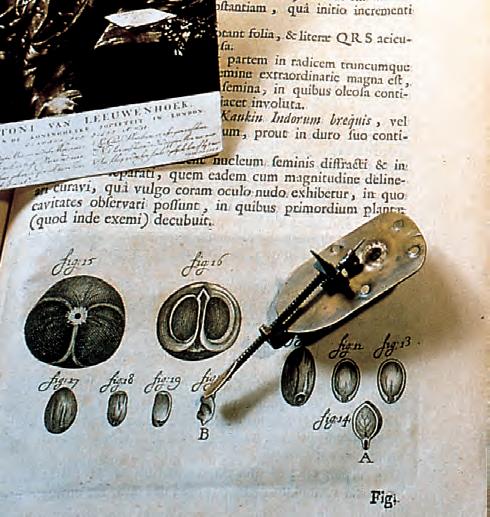
Microscopi utilitzat per Robert Hooke. Al fons, el seu llibre Micrographia, obert per la làmina que il·lustra l’estructura del suro.
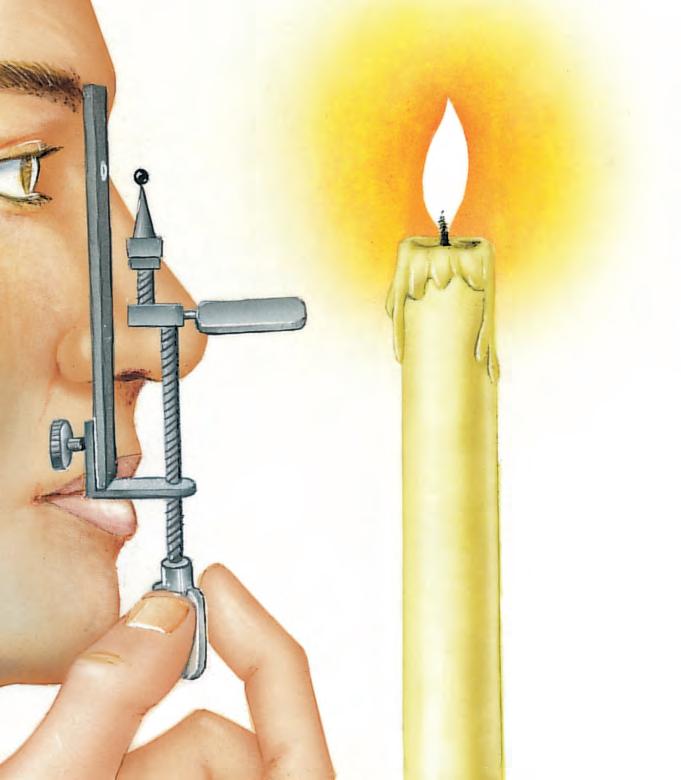
Esquema del funcionament del microscopi
L: lent
O: objecte
R: cargol de rotació
A: cargol d’aproximació
D: cargol de desplaçament
F: font de llum
1878
1665
L’anglès Robert Hooke (1635-1703) observa una fina làmina de suro amb un microscopi compost de pocs augments. Hi pot veure allò que en realitat són els buits i les parets de cèl·lules mortes del teixit del suro. Impressionat per la semblança que l’estructura té amb les cel·les d’una bresca del rusc de les abelles, diu que és formada per cèl·lules, nom que ha fet història.
1677-1683
L’holandès Anton van Leeuwenhoek (1632-1723) descobreix i descriu la vida microscòpica (els protozous i els espermatozoides), i fins i tot entreveu els bacteris. Els seus microscopis (de fet són lupes, ja que tenen una sola lent molt petita muntada sobre un suport), li donen un augment màxim d’uns 300x. Amb aquest nivell d’augments, les distorsions produïdes per les lents no tractades són ja molt grans i a vegades el porten a errors. Abans que Leeuwenhoek, l’italià Marcello Malpighi (1628-1694), que havia descobert la circulació capil·lar, i l’holandès Jan Swammerdam (1637-1680) havien fet també algunes observacions de vàlua.
1828
El botànic escocès Robert Brown descobreix el nucli cel·lular.
1838
L’alemany Matthias J. Schleiden (1804-1881) proclama la teoria cel·lular en les plantes.
1839
L’alemany Theodor J. Schwann (1810-1882) amplia la teoria cel·lular al món dels animals. Aquesta teoria, que presenta alguns punts inexactes sobre la divisió cel·lular, serà ampliada posteriorment per altres naturalistes: Nägeli, Kölliker, Siebold, etc.
1860
Apareixen els microscopis binoculars. Dos anys abans, l’alemany Rudolf Virchow (1821-1902) proclamà el famós aforisme «omnia cellula ex cellula», amb el qual confirmava un punt de la teoria cel·lular que quedava pendent: que cada cèl·lula prové, per reproducció, d’una cèl·lula preexistent.
El físic alemany Ernst Abbe perfecciona els anomenats objectius d’immersió i els condensadors més avançats. Amb aquests sistemes de lents, que se situen entre el focus de llum i l’objecte, i permeten una il·luminació molt més intensa, la capacitat de magnificació del microscopi òptic arriba gairebé al seu sostre, cap als 2000x.
1879
Walther Flemming observa la divisió de la cèl·lula i els processos que hi tenen lloc. Comprova la constància numèrica dels cromosomes i introdueix el mot mitosi per designar aquesta divisió cel·lular.
1887-1890
Theodor Boveri i Oscar Hertwig observen i descriuen la meiosi en cèl·lules animals.
1888
Eduard Strasburger fa el mateix en cèl·lules vegetals.
1899
Santiago Ramón y Cajal postula la teoria de la neurona, que significa l’extensió de la teoria cel·lular al teixit nerviós, l’últim reducte que quedava per confirmar.
1902
Walter Stanborough Sutton i Theodor Boveri formulen la teoria cromosòmica de l’herència, segons la qual la base física de l’herència rau en els cromosomes del nucli cel·lular.
1932
L’alemany Ernst Ruska construeix el primer microscopi electrònic, amb un poder de magnificació de 4000x. Aquest microscopi funciona amb feixos d’electrons en lloc de llum, i amb bobines electromagnètiques en lloc de lents. Cinc anys mes tard, el canadenc James Hillier i el seu deixeble Albert F. Prebus construeixen un nou prototipus de microscopi electrònic de 7000x.
1938
El nord-americà d’origen rus Vladimir Kosma Zworykin (que havia construït la primera càmera de televisió pocs anys abans) desenvolupa els prototipus de microscopis electrònics fins a aconseguir instruments que, combinats amb fotografia, donen una magnificació superior a 2000000x. Aquests microscopis han representat una autèntica revolució en el camp de la citologia, perquè han permès estudiar la ultraestructura cel·lular, és a dir, els detalls arquitectònics de cadascun dels orgànuls cel·lulars.
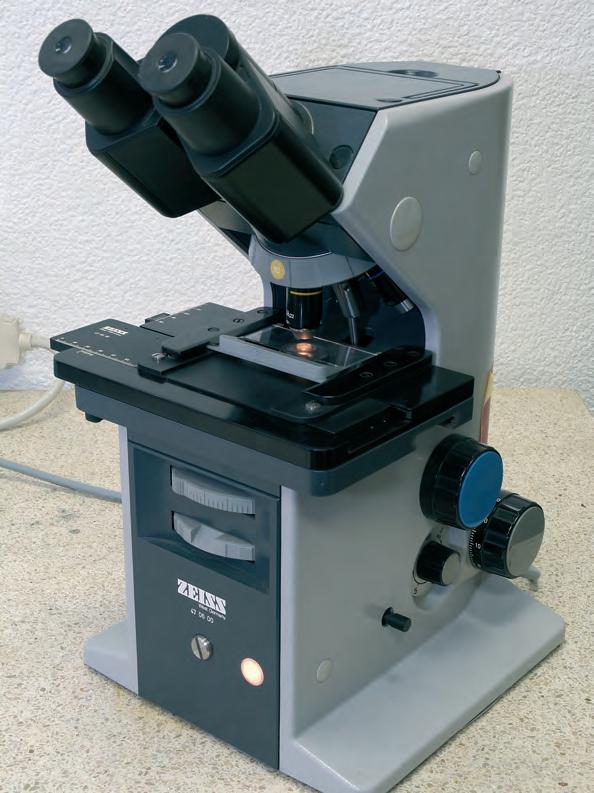
Microscopi òptic.
En l’actualitat, podem formular la teoria cel·lular de la manera següent:
– La cèl·lula és la part viva més petita i amb l’organització més senzilla. Tots els organismes són constituïts per una o per moltes cèl·lules. La cèl·lula és la unitat estructural dels éssers vius.
– La cèl·lula és capaç de portar a terme totes les reaccions químiques necessàries per mantenir-se viva. El bon funcionament dels organismes depèn del funcionament adequat de totes les seves cèl·lules. La cèl·lula és la unitat funcional o fisiològica dels organismes.
– Tota cèl·lula deriva per divisió d’una cèl·lula anterior. En molts organismes, la reproducció queda confiada a una estirp especial de cèl·lules, anomenades reproductores (gàmets, espores…). Tots els organismes, des del més simple fins al més complex, s’originen a partir d’una cèl·lula. La cèl·lula és la unitat reproductora dels éssers vius. – És freqüent que en els organismes pluricel·lulars les cèl·lules presentin les funcions repartides, de tal manera que hi ha cèl·lules especialitzades en una funció determinada i altres cèl·lules que s’especialitzen en altres funcions. Quan això succeeix, l’organisme és integrat per diversos teixits cel·lulars o estirps de cèl·lules que realitzen funcions concretes.
La cèl·lula porta a terme les funcions bàsiques de la matèria vivent i és el sistema organitzat més simple portador de les funcions vitals. La cèl·lula viva és un sistema format per molècules orgàniques i inorgàniques que funciona a temperatura constant (isotèrmic), obté l’energia i les matèries primeres de l’entorn i s’autoordena, s’autoregula i s’autoperpetua.
El microscopi clàssic és un instrument òptic que funciona amb lents d’augment. Els microscopis actuals es basen en la combinació de dues lents (en realitat, dos sistemes de lents), l’objectiu i l’ocular, que augmenten la imatge que els arriba després que la llum hagi travessat la preparació, que ha de ser, per tant, molt fina i sovint tenyida per augmentar-ne el contrast. Un tercer sistema de lents, el condensador, concentra el feix de llum que arriba a la preparació i millora notablement el rendiment del microscopi.
De totes maneres, el microscopi òptic no pot mostrar elements més petits de 0,2 µm. De fet, si bé el seu límit teòric és proper als 2000augments, en la pràctica no és senzill passar de 1500x. El límit ve determinat per la longitud d’ona de la llum emprada i per l’índex de refrac-
ció del medi. Es pot millorar una mica la visió de la preparació si s’utilitza llum ultraviolada o objectius d’immersió, que treballen en un medi líquid.
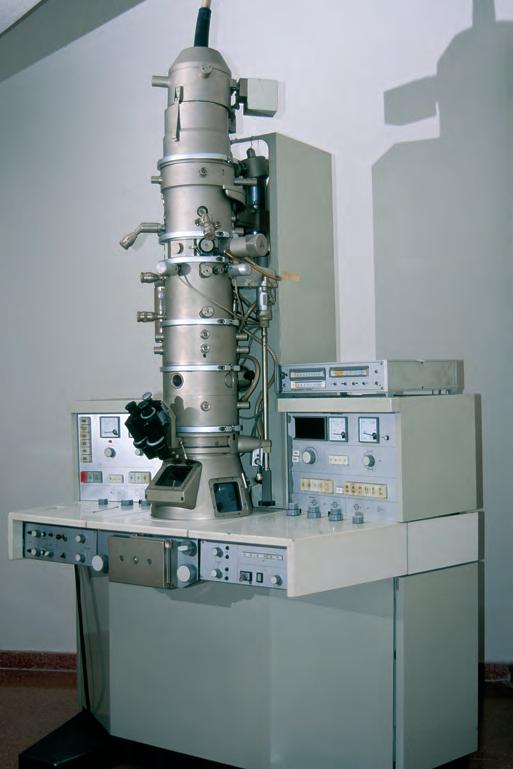
Si bé la majoria dels orgànuls cel·lulars van ser descoberts amb el microscopi òptic, coneixem la ultraestructura d’aquests orgànuls gràcies a la utilització, a partir de la dècada de 1930, del microscopi electrònic, que fa servir feixos d’electrons en comptes de llum i bobines electromagnètiques en lloc de lents. Les imatges obtingudes amb aquests instruments poden proporcionar cents de milers d’augments.
Hi ha dues classes de microscopis electrònics: el microscopi electrònic de transmissió i el de rastreig.
El funcionament del microscopi electrònic de transmissió es basa en el fet que els electrons que travessen una mostra, quan col·lisionen amb els àtoms d’aquesta són dispersats (canvien de direcció de propagació) i, finalment, poden ser interceptats sobre un suport (negatiu fotogràfic, tub de raigs catòdics…) que en proporciona imatges visibles.
Cada punt de la mostra, que ha de ser extremament prima, té una capacitat determinada de dispersió dels electrons: és més o menys «dens» als electrons. Aquesta capacitat, adequadament tractada per addició, per exemple, de substàncies opaques als electrons que hi actuen com un «colorant», millora el contrast de les imatges.
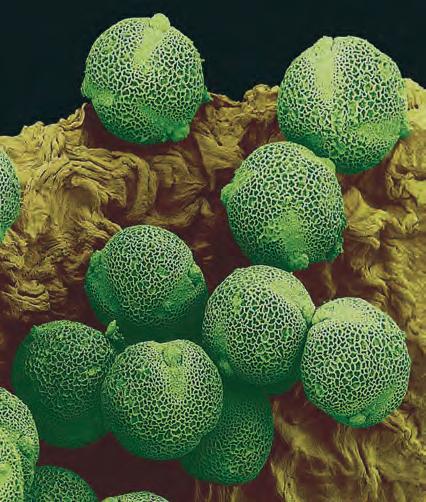
En el microscopi electrònic de rastreig, les imatges es formen a partir dels electrons secundaris que emet la superfície d’una mostra quan és escombrada per un feix d’electrons intens. Aquest microscopi, que no sol passar dels 20000 augments i sovint treballa pels volts del miler d’augments, és especialment adequat per observar estructures tridimensionals, ja que proporciona relleus d’una precisió extraordinària.
L’estudi de la cèl·lula ha progressat no tan sols gràcies als microscopis, sinó també a la conjunció i al desenvolupament de nombroses tècniques que han fet possible millorar les preparacions microscòpiques. Entre aquestes tècniques, cal esmentar la microtomia, aplicada a l’obtenció de talls prims per mitjà d’aparells especials o micròtoms; la citoquímica, que ha desenvolupat tècniques bioquímiques de tinció d’estructures cel·lulars específiques; la centrifugació, i la radiobiologia.


Esquema del funcionament del microscopi electrònic (esquerra) i del microscopi òptic (dreta).
Microscopi òptic o fotònic
El microscopi òptic o fotònic té les característiques següents:
– Possibilita observacions d’entre uns 25 i uns 1500 augments.
– Té un poder de resolució d’unes 0,2 µm.
– Les preparacions tenen un gruix mitjà de 5 a 15 µm i s’obtenen amb micròtoms.
– Les preparacions són il·luminades amb longituds d’ona d’entre 0,4 i 0,8 µm. – Té lents de vidre.
– Les imatges es recullen directament a l’ull.
– S’hi poden observar cèl·lules senceres, amb els seus colors naturals o tenyides amb colorants diversos. No s’hi pot observar la ultraestructura cel·lular.
Microscopi electrònic de transmissió
El microscopi electrònic de transmissió té les característiques següents:
– Els augments més freqüents oscil·len entre 1500 i 200000x, però es pot treballar a menys augments i fins a 500000x.
– Té un poder de resolució d’entre 0,3 i 0,5 nm.
– Les preparacions tenen un gruix d’entre 0,09 i 0,05 nm i s’obtenen amb ultramicròtoms.
– Les preparacions són il·luminades per feixos d’electrons amb una longitud d’ona de l’ordre de 0,5 nm i a 65000 volts.
– Les seves lents són camps magnètics.
– Les imatges es recullen en tubs de raigs catòdics (monitors de televisió) o plaques fotogràfiques.
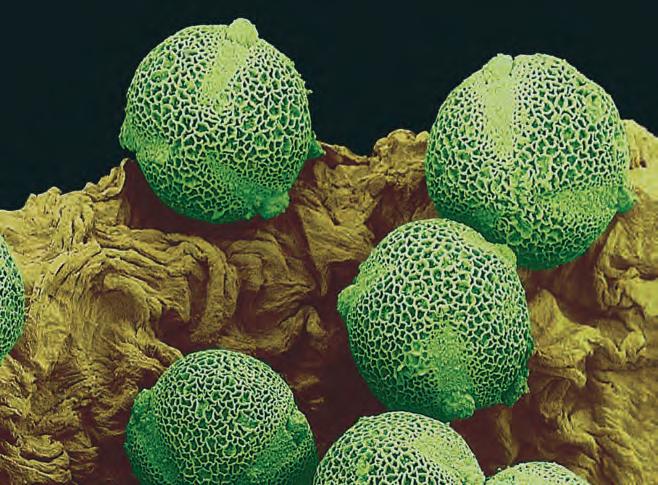
Grans de pol·len de cogombre (en fals color) vistos al microscopi electrònic de rastreig (350x).
Els prefixos que es fan servir en citologia per expressar longituds molt petites, d’acord amb el sistema internacional de mesures (SI), són els següents:
mil·li (m) = 10 –3 m
micro (µ) =10 –6 m
nano (n) = 10 –9 m
A banda del mil·límetre, que resulta massa gran ateses les dimensions de les cèl·lules, les unitats més utilitzades són, per tant, el micròmetre (µm) i el nanòmetre (nm). Els valors i les equivalències són:
micròmetre (µm) = 10 –6 m = 10 –3 mm.
nanòmetre (nm) = 10 –9 m = 10 –6 mm = 10 –3 µm.
A vegades, s’usen també els termes micra i micró com a sinònims de micròmetre
Dècades enrere, s’havia fet servir una altra unitat, avui en desús, l’angstrom (Å), equivalent a 10 –10 metres.
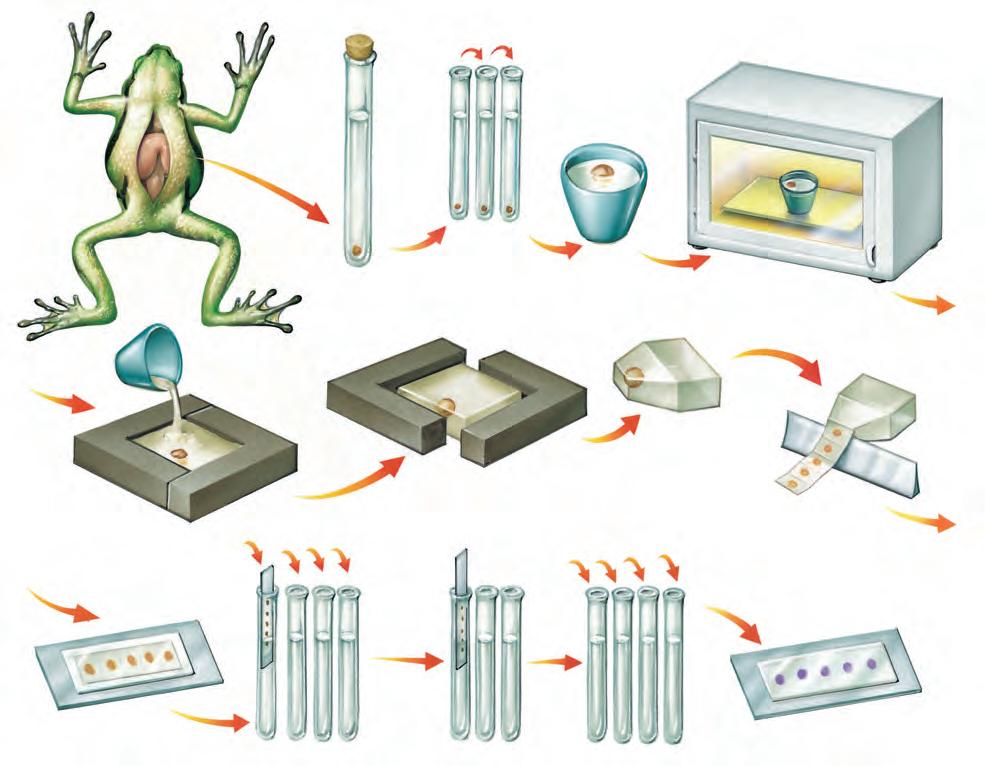
L’obtenció de preparacions microscòpiques
1) Obtenció de mostres fresques d’òrgans o de teixits.
2) Fixació de la mostra. Es deixa la mostra submergida en un fixador (alcohol, formol, etcètera) entre 12 i 24 hores (segons el tipus i la grandària).
3) Deshidratació. Després del rentatge, la mostra se submergeix successivament en alcohol etílic de diferents graduacions.
4) Inclusió en parafina.
5) Tallat de les mostres amb el micròtom. S’obtenen talls d’entre 5 i 15 µm de gruix.
6) Extensió dels talls.
7) Eliminació de la parafina i hidratació.
8) Tinció dels talls desparafinats amb diferents colorants, segons el material a observar i allò que es pretén veure.
9) Rentatge i deshidratació.
10) Muntatge. Els talls, tenyits i rentats, es posen a la part central d’un portaobjectes (net i desgreixat) i damunt es col·loquen els cobreobjectes. Per fixar la preparació, es fa servir algun adhesiu, com ara el DPX.
Mètode d’obtenció de preparacions microscòpiques.
Portaobjectes
Cobreobjectes
Portaobjectes
1.1. La imatge que es veu a través d’un microscopi és invertida i augmentada. La longitud aparent d’un objecte és igual a la longitud real multiplicada per l’augment del microscopi. Així, per exemple, un objecte de 20 µm de longitud vist amb un microscopi amb ocular de 10x i objectiu de 40x presenta una longitud aparent de 8000 µm. La longitud real, l’aparent i l’augment del microscopi mantenen sempre aquesta relació:
longitud aparent = longitud real × augment
Si un microscopi augmenta 500 vegades, quina longitud aparent, expressada en mil·límetres, tindrà un objecte, la longitud real del qual és de 20 micròmetres?
1.2. Un micròmetre equival a… a) …103 nm; b) …102 nm; c) …10–2 nm; d) …10–3 nm; e) …10–3 m.
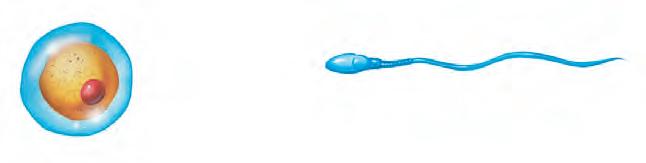
1.3. Al microscopi, els òvuls i els espermatozoides es veuen aproximadament com en la il·lustració que tens a sota. Fixa’t que cada cèl·lula presenta un augment diferent. Digues quina és la mida real, en micròmetres, de cada cèl·lula.
100 augments
800 augments
1.4. Formula la teoria cel·lular segons s’entén actualment i explica quines diferències presenta amb la teoria cel·lular que van formular Schwann i Schleiden.
1.5. Per què els virus no es consideren cèl·lules?
1.6. De quina manera es formen les imatges en un microscopi electrònic? Digues quins són els dos tipus bàsics de microscopi electrònic, quina és la principal diferència de funcionament entre un tipus i l’altre, i per a què s’utilitza cada un.
1.7. L’òptic i naturalista holandès Anton van Leeuwenhoek va escriure, l’any 1674: «He pres una mica de sang de la mà i he observat que consisteix en petits glòbuls arrodonits que neden en un líquid clar.»
Com ho va poder descobrir? Com funcionaven els microscopis que feia servir? Què és el que va veure exactament? A què es referia? ¿Es podien veure les cèl·lules de la sang amb l’augment dels seus microscopis? ¿Leeuwenhoek utilitzava el concepte i el terme cèl·lula?
1.8. L’alga unicel·lular Chlamydomonas té uns 15 micròmetres de longitud i neda a una velocitat de 120 micròmetres per segon. A quina velocitat comparativa hauria de nedar un peix de 20 cm de longitud per aconseguir el mateix desplaçament relatiu?
1.9. Assimila les formes d’un parameci i d’un bacteri a la d’un cilindre cinc vegades més llarg que ample, i suposa que un parameci de 100 micròmetres de longitud ingereix cada dia 5000 bacteris de dos micròmetres de longitud. Calcula quin tant per cent de volum corporal del parameci representa la seva ingesta diària de bacteris.
1.10. Els glòbuls vermells dels mamífers són cèl·lules anucleades que es formen contínuament per substituir els que són destruïts en el fetge i en la melsa. Els glòbuls vermells de la sang humana tenen una vida mitjana de cent vint dies i es troben en una quantitat que oscil·la al voltant dels cinc milions per mil·límetre cúbic de sang. Quants glòbuls vermells per segon es formen en un adult amb cinc litres de sang?
1.11. Un parameci que disposi de prou aliment, en un laboratori es divideix en dos cada 45 hores. Tenint en compte que un parameci té una massa aproximada d’1 × 10⁻⁶ mg, digues quina serà la massa d’un cultiu de paramecis al cap d’un dia, d’una setmana, de dues setmanes i d’un mes de cultiu. Compara les xifres resultants amb algunes magnituds conegudes.
1.12. Relaciona cada conjunt de paraules del primer grup amb el conjunt del segon grup.
Primer grup: teoria cel·lular, Theodor Boveri, primer microscopi electrònic, va descobrir el nucli cel·lular, Santiago Ramón y Cajal. Segon grup: Robert Brown, teoria de la neurona, Rudolf Virchow, observació de la meiosi al microscopi, Ernst Ruska.
1.13. El microscopi dóna imatges d’una grandària superior a la real. La grandària aparent no és fàcil de precisar, si no és mitjançant l’ús
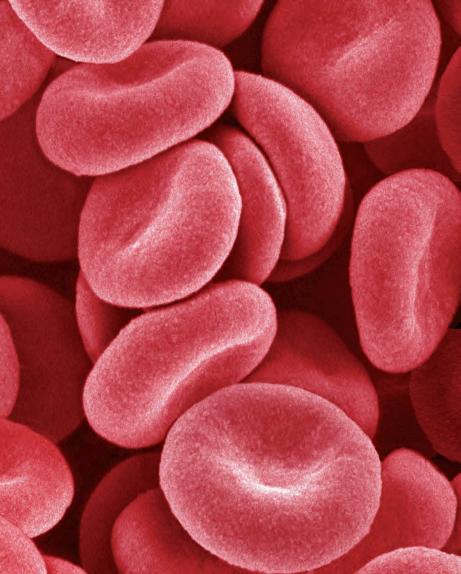
Glòbuls vermells (2000x).
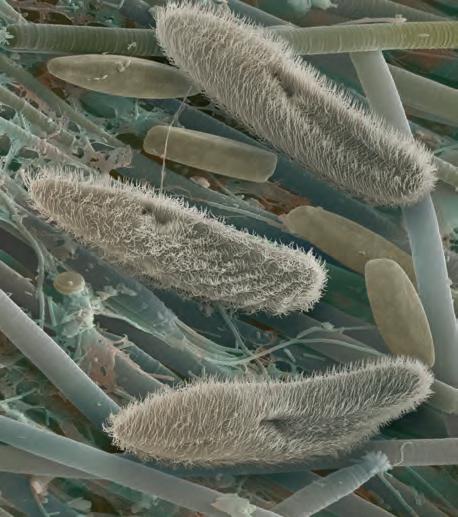
Paramecis vistos al microscopi electrònic de rastreig. S’observen clarament la «boca», o citostoma, i les bandes d’abundants cilis (300x).
d’una escala graduada especial; tanmateix, és prou intuïtiva. Tenint en compte això, respon a les preguntes següents:
a) Un microbi determinat, vist al microscopi, té una longitud aparent d’1 cm. La longitud real d’aquesta espècie de microbis és d’1 µm. Quin és, doncs, l’augment del microscopi?
b) Treballem amb un microscopi que té un objectiu de 40 augments (40x), però en el qual no hi ha cap indicació respecte a l’augment de l’ocular. Amb aquest microscopi mirem una espora de 50 µm de diàmetre, de manera que sembla que tingui 2 cm de diàmetre. Quin és l’augment de l’ocular?
c) En una observació microscòpica de microbis es fa servir un ocular de 15 augments (15x) i un objectiu de 40 augments (40x). Quin és l’augment real d’aquest microscopi?
d) Amb aquest microscopi s’observa un microbi amb un diàmetre aparent d’1 mm. Quin és el seu diàmetre real?
e) Quina longitud aparent, expressada en micròmetres, tindrà una cèl·lula de 20 µm de longitud observada amb aquest microscopi?
Expressa la longitud anterior en mil·límetres, en centímetres i en metres.
1.14. A continuació, tens el recordatori d’algunes normes bàsiques d’ús del microscopi. Llegeix-les i completa els espais buits amb els termes següents: més, menys, micromètric, macromètric, objectiu, ocular, il·luminació, preparació, lents
1) Per enfocar una … començarem sempre amb l’objectiu de … augment. Mirant pel costat –no pas directament a través de l’ocular– aproparem el tub òptic fins gairebé tocar la preparació i aleshores començarem a enfocar, separant a poc a poc l’objectiu de la preparació –amb el cargol … – mentre mirem per l’ … . Si ho fem a l’inrevés –baixant el tub òptic mentre mirem per l’ocular–, podem trencar l’ … , la part més delicada i valuosa del microscopi.
2) Un cop enfocada la … farem l’ajustament amb el cargol … .
3) Abans de posar un objectiu de … augment, centrarem –en el camp de visió– l’objecte o la part que ens interessa veure amb més detall.
4) Per a una bona … cal situar-se d’esquena a les finestres o a altres focus importants de llum per evitar reflexos. Si es pot triar, és millor la llum natural.
5) El microscopi és un instrument de precisió. Convé tenir la precaució de no sotmetre’l a cops ni moviments bruscos i evitar qualsevol acció que pugui ratllar les … . Cal tractar-lo amb cura i guardar-lo sempre amb la funda i dins l’estoig per preservar-lo de la pols i la humitat.
La cèl·lula és la unitat fonamental de la matèria vivent. La branca de la biologia que s’ocupa de l’estudi de la cèl·lula és la citologia. Tradicionalment, la principal divisió del món viu s’ha establert entre els vegetals i els animals. No obstant això, quan s’estudien els organismes pel que fa al caràcter cel·lular, la principal divisió s’estableix entre els organismes procariotes, constituïts per cèl·lules sense nucli, i els eucariotes, formats per cèl·lules amb nucli ben diferenciat.
La generalització de l’ús del microscopi electrònic ha fet possible conèixer amb molt detall la ultraestructura cel·lular i establir les principals diferències entre l’organització cel·lular procariota i l’eucariota, diferències que es detallen en el document de la pàgina següent. No hi ha dubte que la cèl·lula procariota té una estructura més simple que l’eucariota. Ara bé, malgrat la simplicitat estructural, presenta una fisiologia molt variada i es pot afirmar que la cèl·lula procariota va «inventar» gairebé tots els processos metabòlics que utilitzen la gran diversitat de formes actualment vivents.
Les cèl·lules procariotes són molt més antigues que les eucariotes: s’accepta que van aparèixer uns dos mil milions d’anys abans i van dominar la biosfera durant un període de temps llarguíssim. L’aparició i el desenvolupament de les eucariotes no va comportar-ne l’eliminació.
Els organismes procariotes continuen desenvolupant funcions essencials en la biosfera, com ara la fixació del N2, i ocupen nínxols ecològics, sovint extrems, dels quals no han pogut ser desplaçats pels eucariotes, generalment més eficients. En les darreres dècades, s’ha formulat la suggeridora teoria de l’endosimbiosi o de les comunitats microbianes coevolucionades. Aquesta teoria és difícil de comprovar, atesa la seva dimensió temporal, però és una fecunda hipòtesi de treball, la qual suposa que la cèl·lula eucariota és el resultat de l’evolució de la simbiosi de primitives formes «bacterianes» (mitocondris, cloroplastos, flagels, cilis…).
Pel que fa als virus, cal considerar-los a part. No compleixen els principis de la teoria cel·lular, ja que no tenen metabolisme propi i per reproduir-se han de parasitar cèl·lules vives. En tot cas es poden definir, tot i la seva limitada autonomia, com a organismes acel·lulars
L’any 1977 l’equip del microbiòleg Carl Woese en estudiar i comparar l’ARN ribosòmic de diferents grups de bacteris va descobrir que els anomenats bacteris metanogènics tenien seqüències de nucleòtids clarament diferents de la resta de procariotes. Van proposar que als dos gran dominis de la biosfera, els procariotes i els eucariotes, calia afegir un nou domini per incloure els esmentats bacteris. El nom proposat per aquest nou domini va ser arqueobacteris, per indicar que eren organismes molt antics.
Posteriorment s’ha comprovat que les diferències bioquímiques i estructurals entre els bacteris metanogènics i la resta de bacteris és molt important. S’han descrit prop de tres centenars d’arqueobacteris i s’ha comprovat que la majoria hi viuen en ambients extrems: a temperatures elevades (generalment més de 80º C), sense oxigen i en aigües hipersalines o àcides.
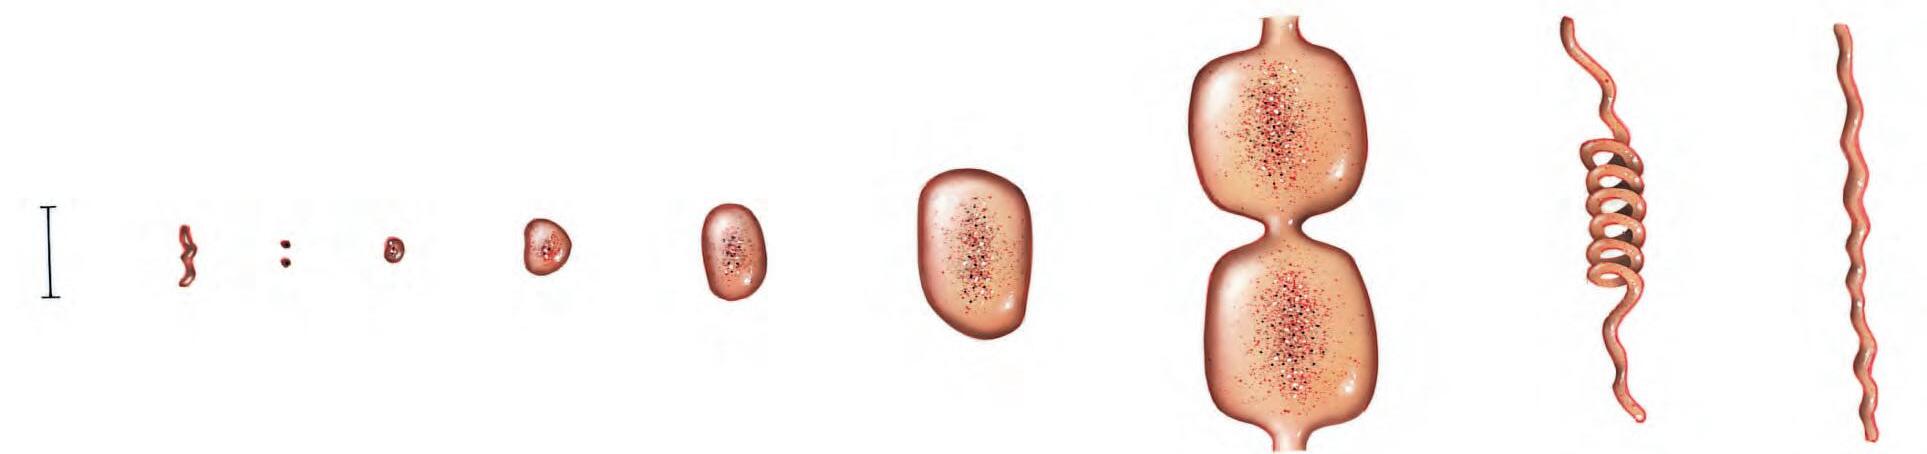
L’enclosimbiosi
L’enclosimbiosi és la condició d’un organisme que viu dintre d’un altre en associació simbiòtica, bé a l’interior de les cèl·lules (endocitobiosi, com la dels bacteris que van acabar transformant-se en mitocondris i cloroplastos), bé en els espais intercel·lulars (com les associacions entre fongs i arrels de certs arbres).
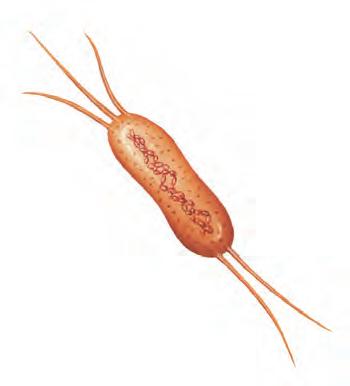
– El material genètic està en contacte directe amb el citoplasma. No té un nucli diferenciat i presenta una gran molècula d’ADN no associada a histones. A més, hi pot haver petits fragments d’ADN: els plasmidis.
– És de mida petita, al voltant de pocs micròmetres, i d’estructura senzilla.
– La divisió cel·lular és per escissió binària o escissiparitat. No té centre cel·lular.
– La respiració és anaeròbia (estricta o facultativa) o aeròbia. No presenta mitocondris. Les cadenes respiratòries es troben associades a la membrana cel·lular.
– No té motilitat intracel·lular.
– Té orgànuls citoplasmàtics poc abundants i envoltats per una membrana. Els carboxisomes i els clorosomes són exemples d’aquests orgànuls citoplasmàtics.
– Els ribosomes són més senzills que en la cèl·lula eucariota i tenen un coeficient de sedimentació de 70 svedbergs.
La cèl·lula eucariota
– El material genètic està embolcallat per una membrana que el separa del citoplasma. Té un nucli constituït per l’ADN, organitzat en un nombre plural de cromosomes i associat a histones.
– És més gran i més complexa que la cèl·lula procariota.
– La divisió cel·lular es produeix per mitosi típica. Presenta sovint centre cel·lular.
– La respiració és aeròbia (pot mostrar adaptacions secundàries a la vida anaeròbia). Presenta mitocondris que contenen els enzims de les cadenes respiratòries.
– Té una important motilitat intracel·lular.
– Té nombrosos orgànuls citoplasmàtics (complex de Golgi, reticle endoplasmàtic, lisosomes, vacúols…) envoltats per una membrana de tipus unitari.
– Els ribosomes són més complexos que en la cèl·lula procariota i tenen un coeficient de sedimentació de 80 svedbergs.
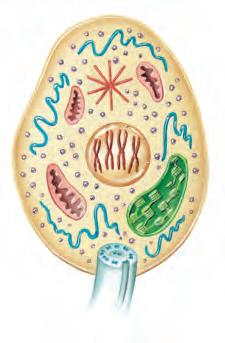
Esquemes d’una cèl·lula procariota (a) i d’una cèl·lula eucariota (b) a escales diferents.
Mitocondri
Nucli
Membrana
Cloroplast (a les cèl·lules vegetals)
Reticle endoplasmàtic
Flagel
Els organismes procariotes
– Són unicel·lulars.
– Presenten fenòmens de sexualitat amb intercanvi de material genètic (conjugació, transducció, transformació) i de reproducció asexual.
– Poden ser autòtrofs (fotoautòtrofs i quimioautòtrofs) o heteròtrofs. No presenten cloroplastos. La fotosíntesi pot ser anaeròbia (sense fotòlisi de l’aigua i producció d’oxigen) o aeròbia.
– Inclouen els bacteris i les cianofícies, que formen el regne de les moneres.
Els organismes eucariotes
– N’hi ha d’unicel·lulars i n’hi ha de pluricel·lulars.
– Els pluricel·lulars es reprodueixen sexualment amb formació de gàmetes, fecundació i formació d’un zigot diploide.
– Poden ser autòtrofs (fotoautòtrofs) i heteròtrofs. Els primers presenten cloroplastos amb els pigments i els enzims de la fotosíntesi, que sempre és aeròbia.
– Es divideixen en quatre regnes: protoctistos, fongs, vegetals i animals.
– En els pluricel·lulars, les cèl·lules apareixen diferenciades en teixits que formen òrgans, aparells i sistemes.
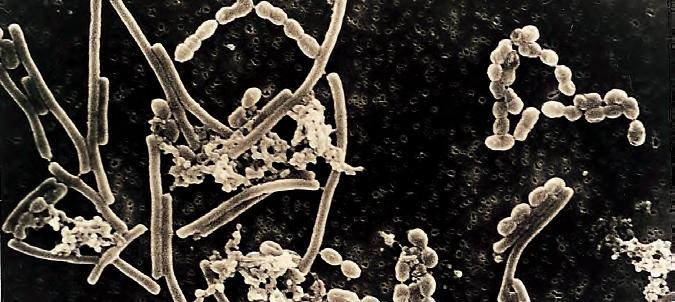
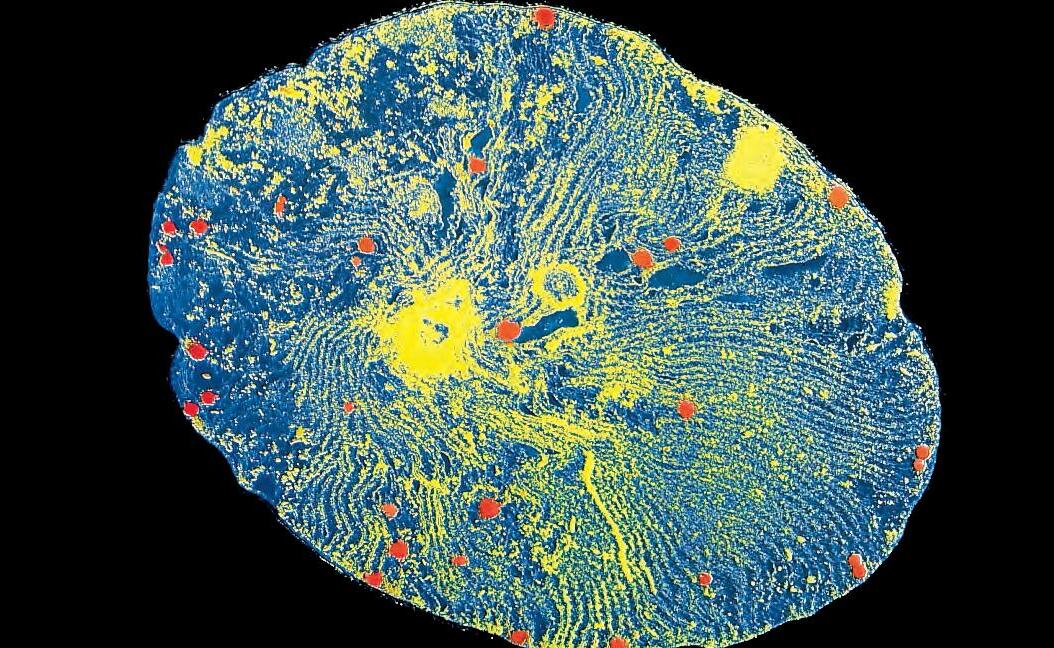
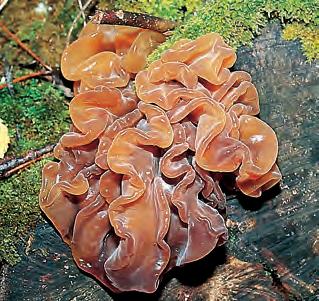
a) Lactobacils.
b) Cianofícia.
c) Fong.
d) Moixó.
1.15. Llegeix el text següent de Theodor Schwann i contesta a les preguntes que hi ha a continuació:
LESPRIMERESEXPOSICIONS
DELATEORIACEL·LULAR
Si bé les plantes presenten una gran varietat de formes externes és notable la senzillesa de la seva estructura interna. L’extraordinària diversitat de les seves formes resulta exclusivament de les diferents maneres d’unir-se les estructures elementals simples, és a dir, les cèl·lules, les quals tot i que presenten variades modificacions són, fonamentalment, les mateixes. La classe sencera de les plantes cel·luloses està únicament constituïda per cèl·lules, i moltes per agrupació de cèl·lules homogènies o, fins i tot, per una única cèl·lula. De la mateixa manera, les plantes vasculoses en les seves primeres fases, estan integrades per simples cèl·lules. El gra de pol·len, el qual, segons el descobriment de Schleiden, és la base de la nova planta, és una cèl·lula en les seves parts essencials.
En les plantes vasculoses perfectament desenvolupades, l’estructura és més complexa. Des de fa algun temps hom distingeix en elles el teixit cel·lular, el teixit fibrós i els vasos o tubs espirals. Les investigacions sobre l’estructura i, especialment, sobre el desenvolupament d’aquests teixits han demostrat, tanmateix,
que aquestes fibres i tubs espirals no són altra cosa que cèl·lules allargades (...). Les plantes vasculoses, per tant, estan constituïdes igualment per cèl·lules, algunes de les quals atenyen un grau molt alt de desenvolupament (...).
Els animals que presenten una varietat de formes externes molt més gran que la del regne vegetal, tenen també uns teixits d’estructura més complexa, principalment en les classes més elevades (...). Molt gran és la diferència entre un múscul i un nervi, entre aquest i el teixit cel·lular (que no té res a veure amb el vegetal del mateix nom), entre l’elàstic i el corni, etc. Malgrat això, en estudiar el desenvolupament d’aquests teixits es manifesta que totes les seves múltiples formes s’originen igualment només de cèl·lules, completament anàlogues a les vegetals i coincidents amb elles en alguns dels seus fenòmens vitals. El propòsit del present treball és provar aquest fet amb tota una sèrie d’observacions.
THEODOR SCHWANN, Investigacions microscòpiques
a)Com resumiries el contigut del text?
b)Qui era Theodor Schwann? Per què el text que has llegit és important en la història de la biologia?
c)Què és la teoria cel·lular? Com la resumiries?
d)Per què la teoria cel·lular no va ser formulada fins al segle XIX?
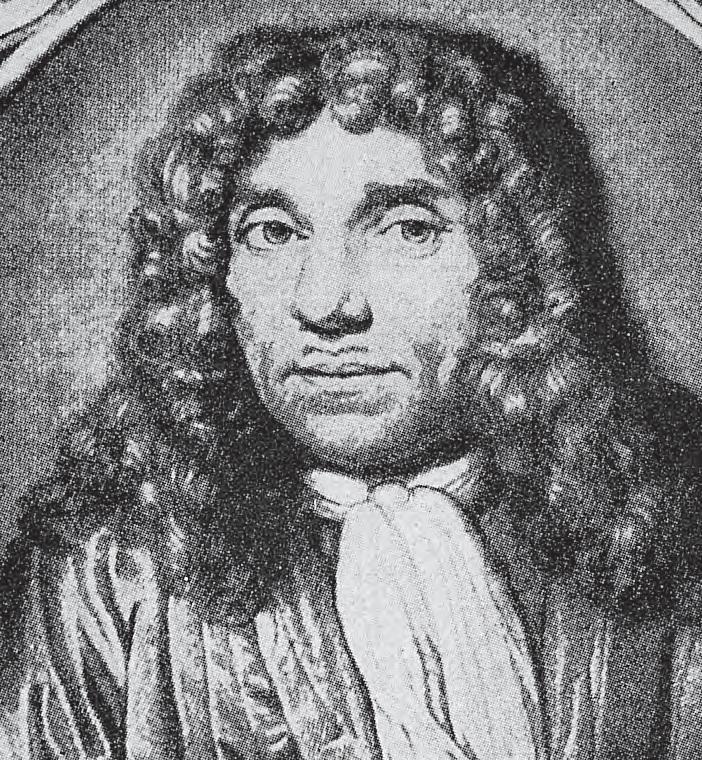
1. Robert Hooke (1635-1703), Anton van Leeuwenhoek (1632-1723), Jan Swammerdam (1637-1680), Marcello Malpighi (1628-1694), Nehemiah Grew (1641-1712), Francesco Redi (1626-1698) i Crisòstom Martínez (1638-1694), entre d’altres, van ser importants microscopistes que, en el transcurs del segle XVII, van descobrir aspectes importants del món microscòpic. Llegeix el text següent, completa la teva informació i contesta a les preguntes que hi ha en la pàgina següent:
De tots els microscopistes clàssics, el que més impressionà els seus contemporanis fou Anton van Leeuwenhoek. Nascut a Delft, hi aconseguí un càrrec oficial, de poca importància, que li permetia dedicar el seu temps a la microscòpia. Ignorava completament la resta del món. Leeuwenhoek construí sempre els seus microscopis, les lents i els accessoris. Tanmateix, els millors microscopis no els volgué ensenyar mai, fins al punt que en una de les seves comunicacions feia notar que en reservava alguns exclusivament per als seus estudis i que «mai ningú, que no fos ell, no hi havia mirat».
El que caracteritza Leeuwenhoek d’entre els microscopistes clàssics és el fet d’haver treballat exclusivament amb lents simples. En aquella època, els microscopis compostos presentaven el que avui s’anomena «aberració cromàtica»; en canvi, una lent simple no acusa aquest inconvenient, tot i que, d’altra banda, si l’augment és molt gran, l’àrea del camp nítid es redueix molt. El principi general de construcció dels microscopis de Leeuwenhoek és totalment simple; la forma d’usar-los, tanmateix, ben complicada.
Leeuwenhoek no treballà mai llargues temporades sobre un mateix tema, sinó que es permetia deambular
amb el seu microscopi pels diferents aspectes de la natura, retrobant, a cada pas, noves meravelles […]: amplià el coneixement de la circulació capil·lar […] i dels glòbuls sanguinis […], donà excel·lents referències de l’estructura microscòpica dels músculs, del cristal·lí de l’ull, de les dents, de la pell […]; és molt notable, també, el seu treball sobre els ulls compostos dels insectes […], on demostrava que aquestes lents formen nombroses imatges invertides […]. Entre les millors observacions de Leeuwenhoek cal esmentar les que es refereixen al desenvolupament de la formiga, a la naturalesa de la cotxinilla (un insecte), a l’aparell filador de les aranyes i al desenvolupament de les cloïsses; però tal vegada la seva conquesta màxima fou la d’haver albirat l’existència dels bacteris (1683).
Si s’examinen els escrits dels microscopistes clàssics, la primera impressió que se’n treu és que el seu treball no té un sistema determinat o una finalitat concreta […].
La infinita complexitat dels éssers vius que el seu treball revelava fou filosòficament tan pertorbadora com l’ordenada majestuositat del món astronòmic que Galileu i Kepler havien desvetllat […], si bé les seves conseqüències tardaren molt més temps a penetrar en la ment dels homes.
Hom no pot deixar de quedar impressionat per l’aïllament d’aquests homes. Com és freqüent, tots ells eren de caràcter excèntric. Constituïen un grup quasi totalment separat dels altres investigadors. Gairebé no tenien deixebles ni, tampoc, imitadors […]. Romangueren sense continuadors efectius fins al segle XIX.
a)Redacta una biografia breu (lloc de naixement, època, activitats i principals descobriments) de cada personatge esmentat.
b)Fes una exposició raonada dels principals avantatges i inconvenients inherents als microscopis usats per Leeuwenhoek, tant des d’un punt de vista objectiu com en relació amb el moment en què elsva usar i els instruments més emprats en aquella època.
c)Explica per què aquells microscopistes no eren especialistes, tal com entenem ara l’especialització dels científics. ¿És mera casualitat que no ho fossin o és un fet produït per les circumstàncies d’aquell moment científic? Raona la resposta.
d)Què perseguien aquells microscopistes? Quina finalitat buscaven?
e)Quines eren les condicions de treball i les circumstàncies personals i psicològiques dels microscopistes del segle XVII?
f)Comenta aquesta frase del text: «La infinita complexitat dels éssers vius que el seu treball revelava fou filosòficament tan pertorbadora com l’ordenada majestuositat del món astronòmic que Galileu i Kepler havien desvetllat […], si bé les seves conseqüències tardaren molt més temps a penetrar en la ment dels homes.»
2. Llegeix el text següent de Robert Hooke i contesta a les preguntes que hi ha en la pàgina següent. (Si mai vols repetir l’experiència, no ho facis tal com diu Hooke, perquè et podries fer un bon tall; fes servir un micròtom de mà.)
Vaig prendre un tros de suro i amb un ganivet afilat com si fos una navalla en vaig tallar un fragment mirant de deixar ben llisa la seva superfície.
Aleshores, la vaig examinar amb diligència amb un microscopi i vaig poder percebre-hi petits porus, però sense poder distingir-los clarament.
[…] Amb el mateix ganivet vaig fer d’aquella peça de superfície llisa una llesca ben prima, la vaig posar sobre un suport negre, ja que per si mateixa era blanca, i la vaig il·luminar mitjançant una grossa lent planoconvexa.
Aleshores vaig poder veure perfectament que la làmina estava tota perforada i provista de porus, iguals que els d’una bresca d’abelles, si bé en aquest cas els porus no eren regulars i diferien d’una autèntica bresca en alguns punts:
En primer lloc, tenen molt poca substància sòlida en comparació de la cavitat buida continguda entre els intersticis (parets, com jo els denomino) o particions entre els porus, els quals intersticis són prims en relació amb els porus en si mateixos, talment com delicades pel·lícules de cera d’una bresca […] que inclouen i constitueixen les cèl·lules hexagonals.
En segon lloc, aquests porus, o cèl·lules, no són gaire profunds, però es troben en gran nombre, com a petites capsetes, separades entre si per fins diafragmes […].
ROBERT HOOKE,
Micrographia
a)Quin és l’origen de la paraula cèl·lula?
b)Amb què comparava, Hooke, el que veia?
c)Què veia realment Hooke?
d)Va veure les membranes de les cèl·lules?
e)Va veure la membrana plasmàtica?
f)Va veure la paret de cel·lulosa?
3. Suposa que per poder fer l’observació de cèl·lules vegetals disposes del material següent: microscopi, portaobjectes i cobreobjectes, agulles emmanegades, tisores, pinces, cristal·litzador, paper de filtre, aigua destil·lada, blau de metilè (o un altre colorant) i cebes.
Tenint en compte aquesta premissa, contesta a les preguntes següents:
a)Explica els passos i el mètode que seguiries per fer una preparació.
b)Tens un microscopi amb un ocular de 12,5x i un objectiu de 10x. Si la longitud aparent d’una cèl·lula de ceba vista amb aquest microscopi és de 25mm, quina és la longitud real de la cèl·lula?
c)Descriu què veuries al microscopi.
4. Digues si cada afirmació és aplicable a les cèl·lules procariotes, a les eucariotes, a totes dues o a cap:
a)Tenen un nucli constituït per ADN.
b)Són les més antigues.
c)Tenen plàsmids.
d)No tenen ADN.
e)Tenen mitocondris.
f)Algunes pertanyen al regne animal, altres al vegetal i altres al dels fongs.
g)Algunes són autòtrofes.
h)Es classifiquen en el regne de les moneres.
i)No tenen nucli diferenciat.
j)Tenen membrana plasmàtica.
k)Són més simples estructuralment, però tenen una fisiologia molt variada.
5. Digues, per a cada una de les frases de sota, si es refereix al microscopi òptic o a l’electrònic:
a)Té un poder màxim de resolució comprès entre 0,3 i 0,5 nm.
b)Es diu també microscopi fotònic.
c)N’hi ha de transmissió i de rastreig.
d)No permet observar la ultraestructura cel·lular.
e)Té lents de vidre.
f)Les imatges que dóna tenen color.
g)Les lents són camps magnètics.
h)Les preparacions s’obtenen amb ultramicròtoms.
i)No permet observar cèl·lules vives, excepte en els darrers models.
j)En el segle XVII ja n’hi havia.
Elements del microscopi.
Part òptica: 1, ocular; 2, objectius; 3, condensador; 4, font de llum.
Part mecànica: 5, tub òptic; 6, revòlver o portaobjectius; 7, braç; 8, columna; 9, platina; 10, cargol macromètric; 11, cargol micromètric; 12, diafragma; 13, portafiltres; 14, cargol de desplaçament del condensador; 15, peu.
Conèixer les diferents parts del microscopi òptic, el seu funcionament i maneig.
Material
Microscopi òptic.
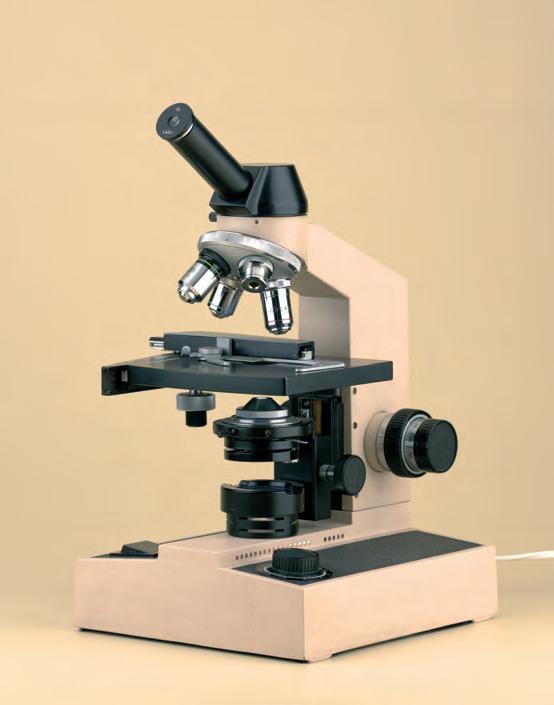
El microscopi és un instrument que serveix per observar de prop objectes molt petits que no són visibles a ull nu.
El que es veu al microscopi òptic és la llum que travessa l’objecte que es vol observar, per a la qual cosa és necessari obtenir seccions o talls molt prims de l’objecte, tenyir-los i muntar-los en un portaobjectes, és a dir, obtenir una preparació.
Els components d’un microscopi es poden agrupar en elements mecànics i elements òptics.
Els elements mecànics són les parts que constitueixen l’estructura del microscopi i donen suport als elements òptics.
El peu és la peça en la qual descansa tota l’estructura del microscopi i que permet recolzar les mans quan es manipulen els cargols d’enfocament. Així mateix, porta el sistema d’il·luminació.
El braç és una peça metàl·lica, generalment inclinada, que uneix la columna amb la part del microscopi on es troben les lents.
La platina és una peça metàl·lica, unida a la columna, generalment quadrada, amb un forat a la part central per deixar passar la llum que procedeix del sistema d’il·luminació. Normalment porta unes pinces per fixar la preparació i, segons el tipus de microscopis, altres accessoris per facilitar l’observació de la preparació.
El revòlver o portaobjectius és una peça metàl·lica circular, giratòria, que porta enroscats els diferents objectius del microscopi (tres o quatre). Un lleuger moviment de la mà permet canviar l’objectiu per fer les observacions de les preparacions.
El tub és la peça metàl·lica, cilíndrica i buida, a l’extrem superior de la qual va introduït l’ocular.
Els dispositius d’enfocament són un o dos cargols adossats a la base del braç que permeten desplaçar la platina amunt o avall i situen la preparació més a prop o més lluny de l’objectiu. El cargol més gran, anomenat cargol macromètric, és de pas ràpid i es fa servir per realitzar un primer enfocament. El cargol micromètric és de pas lent i permet un ajustament precís de l’enfocament.
Els elements òptics fonamentals del microscopi són les lents: l’ocular, l’objectiu i el condensador
L’ocular és la lent a la qual apropem l’ull per fer observacions microscòpiques. Es localitza a l’extrem superior del tub òptic, es pot treure amb facilitat i augmenta la imatge que dóna l’objectiu. Normalment porta gravat el seu augment a la part superior (per exemple x8).
L’objectiu és la lent principal del microscopi i la que en determina la qualitat. La majoria dels microscopis disposen de diversos objectius que van enroscats al revòlver o portaobjectius. A la carcassa de cada objectiu hi ha gravada un xifra que n’indica l’augment (per exemple x40).
El condensador, situat sota la platina, és un sistema de lents que concentra el feix de rajos lluminosos procedents de la font d’il·luminació i dóna una il·luminació uniforme a tot el camp visual. Normalment porta englobat un diafragma per regular l’entrada de la llum.
El focus d’il·luminació pot ser un mirall que reflecteix la llum exterior cap al condensador, però molts microscopis porten una font d’il·luminació elèctrica incorporada.
a) L’augment i el poder de resolució d’un microscopi
L’augment i el poder de resolució d’un microscopi són dues de les característiques més importants de la qualitat de la imatge i, per tant, de la qualitat d’un microscopi.
La major part dels microscopis disposen de més d’un ocular, cadascun d’ells amb un augment que ve indicat a la part superior, i de diversos objectius. El nombre total d’augments amb el qual es treballa s’obté multiplicant l’augment de l’ocular per l’augment de l’objectiu.
El poder de resolució (que a ull nu és de 0,1 mm) es defineix com la capacitat de veure separats dos punts molt propers, és a dir, la capacitat de veure’ls com a dos punts i no pas com a una taca única. Si apliquem aquest concepte al microscopi, podem dir que el seu poder de resolució (que té un
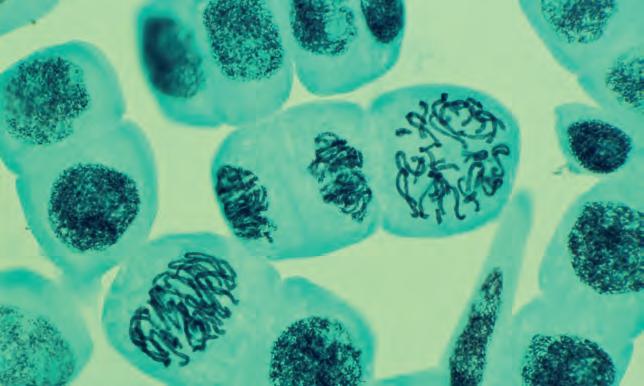
Microfotografia d’epiteli de ceba al microscopi òptic (100x).
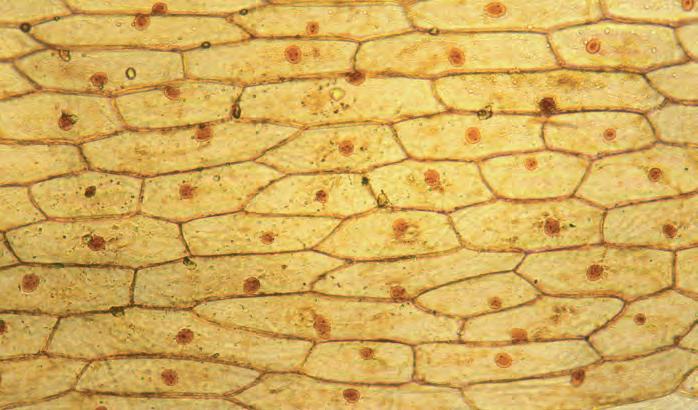
valor màxim de 0,2 micròmetres) és la capacitat d’oferir-nos el detall i no solament l’augment. En el microscopi, el poder de resolució depèn de la qualitat dels objectius i ve determinat per l’anomenada obertura numèrica (que és una mesura de les dimensions del con lumínic refractat per la preparació que pot admetre l’objectiu). Els bons objectius porten sempre inscrites dues xifres: l’augment, amb valors de x4, x10, x40, etc., i l’obertura mecànica, amb valors gairebé sempre inferiors a la unitat (llevat d’objectius especials o objectius d’immersió), però més propers a aquest valor com més qualitat tenen. Els objectius d’immersió permeten elevar l’obertura numèrica i, per tant, el poder de resolució, perquè són pensats per treballar en un medi diferent de l’aire. Això s’aconsegueix posant una goteta d’una substància oleaginosa entre la preparació i l’extrem de l’objectiu (per exemple, oli de cedre) i fent que es toquin.
Per manejar de manera correcta el microscopi et recomanem que realitzis el procés seguint aquests passos:
–Recolza de manera correcta el microscopi damunt la taula d’observació.
–Obre el sistema d’il·luminació i comprova que sigui l’òptima.
–Col·loca la preparació al centre de la platina i fixa-la amb les pinces de fixació.
–Mou el revòlver i posa en posició d’observació l’objectiu de menor augment.
–Situa la platina a una bona distància de l’objectiu.
–Apropa l’objectiu a la preparació utilitzant el cargol macromètric, i vigila que no arribin a tocar-se.
–Mira per l’ocular i enfoca la preparació amb precisió, fins a tenir una visió nítida.
–Sense deixar d’observar per l’ocular, mou la preparació en diferents direccions.
–Un cop feta una primera observació de la preparació, que et donarà una idea general del seu contingut, centra la part que vols observar a més augments.
–Movent el revòlver, situa en posició d’observació un objectiu de més augment. Normalment caldrà fer un petit ajustament de l’enfocament amb el cargol micromètric.
–A mesura que utilitzis objectius de més augment, caldrà regular la il·luminació per mitjà del condensador i del diafragma.
–Una vegada finalitzada la sessió d’observació, fes les operacions següents: apaga el sistema d’il·luminació i desendolla’l; treu la preparació de la platina; posa-hi l’objectiu de menor augment; neteja la platina i les altres parts del microscopi.
–Desa el microscopi al seu lloc.
1. De quines parts del microscopi depèn la correcta il·luminació de la preparació que vols observar?
2. Quan desplaces el condensador, de quina manera varia la il·luminació?
3. Com varia la il·luminació quan obres o tanques el diafragma?
4. En una observació al microscopi, quin recorregut fa la llum des que surt del focus d’il·luminació fins que arriba al nostre ull?
5. Quants grups de lents hi ha en el microscopi? Quin nom reben?
6. Com calcules amb quin augment treballa un microscopi? Quines combinacions d’oculars i d’objectius es poden fer amb el microscopi que fas servir? Fes una taula que inclogui aquestes combinacions i l’augment final de cada combinació.
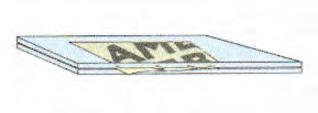
7. Preparació microscòpica amb un tros de paper.
Retalla un trosset de full de diari d’1cm2, aproximadament, que estigui escrit. Enganxa’l sobre un portaobjectes amb una mica de cola i cobreix-lo amb un cobreobjectes, amb quatre puntetes de pega als marges per tal que no caigui. Tria un objectiu de poc augment i enfoca la preparació.
a)Mou la preparació cap a la dreta. Què passa amb la imatge?
b)Mou la preparació cap amunt. Què passa amb la imatge?
c)Tria un objectiu de més augment. Què hi observes, ara?
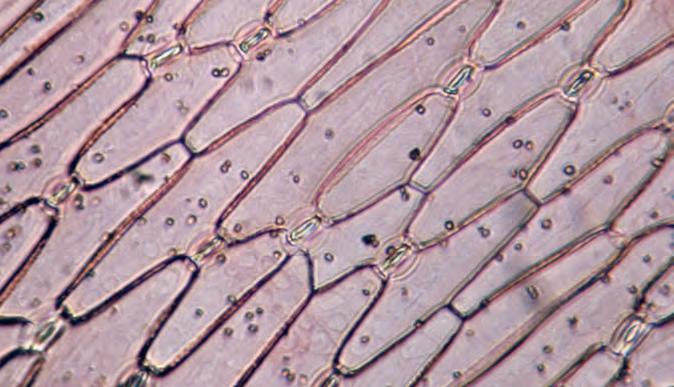
Epidermis amb estomes al microscopi òptic.
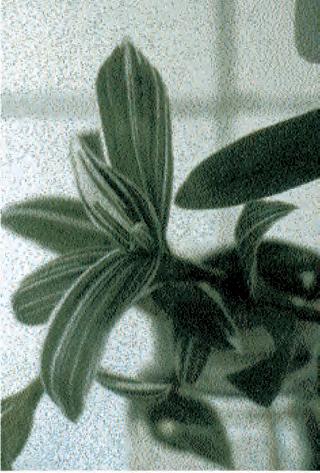
Tradescància.
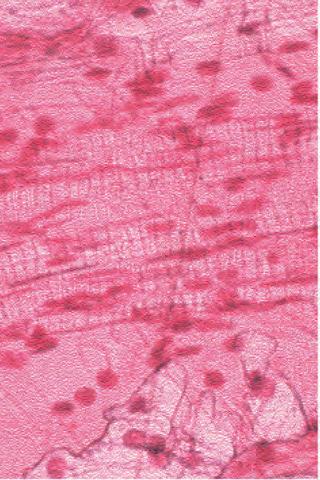
Vasos anellats i espiraliformes de tradescància vistos a través del microscopi òptic (100x).
d)Enfoca un tros de lletra. Les altres fibres del paper, queden enfocades? I si les enfoques, què passa amb les fibres entintades? A mesura que enfoques allò més profund, es desenfoquen les fibres més superficials?
e)En el camp de la fotografia s’usa el concepte de profunditat de camp, que designa «l’espai anterior i posterior respecte al punt d’enfocament en què els objectes queden correctament enfocats». En microscopia també s’usa, aquest concepte. ¿Creus que hi ha alguna relació entre augment i profunditat de camp? Comprova-ho.
8. La tradescància –també dita amor d’home, misèries o cua de mico–, molt comuna com a planta ornamental, és originària d’Amèrica, i ens servirà per observar un seguit de fenòmens. Si no tens tradescàncies, bona part d’aquestes observacions les pots fer amb alguna altra planta, per exemple, lliris. Un cop fetes les preparacions que indiquem tot seguit, mira-les al microscopi, dibuixa el que hi observes, contesta a les preguntes i fes les activitats.
a)Observació dels estomes, que són foradets de l’epidermis per on entren i surten els gasos. Arrenca un trosset d’epidermis de fulla amb l’ungla, procurant de no arrossegar els teixits de sota. Munta’l entre el portaobjectes i el cobreobjectes amb una goteta d’aigua i mira’l al microscopi. Quina forma tenen les cèl·lules de l’epidermis? I les dels estomes? Les primeres, tenen cloroplastos? I les segones?
b)Observació del parènquima i dels cloroplastos. Si mirem de fer la preparació anterior, ens hi sortiran trossos de parènquima adherits, de color verd. Aquestes parts de la preparació són les que hem d’estudiar ara. El parènquima és el teixit que fa la fotosíntesi i té, per tant, cloroplastos. Com són? N’hi ha gaires?
c)Observació dels moviments del citoplasma (cal que la planta sigui florida). Agafa un estam, i millor encara un dels seus pèls blancs. Mira’l al microscopi a força augment, i amb calma. Hi veuràs bé els moviments interns del citoplasma. Tracta de definir-los.
Ara enretira el cobreobjectes, posa-hi una gota de blau de metilè i torna a observar el preparat. Quines diferències hi ha?
d)Observació de vasos anellats i espiraliformes (cèl·lules conductores). Fes un esqueix i deixa’l uns quants dies en aigua per tal que faci arrels. Pren una arrel que tingui poc més d’un centímetre i talla’n llenques amb una fulla d’afaitar. Escull-ne la més prima. Tenyeix-la uns deu minuts amb el colorant orceïna o un d’equivalent, segons el criteri del professor o de la professora. Posa-hi el cobreobjectes, tapa’l amb un paper de filtre doblegat i prem-lo amb el dit gros tant com puguis. Ara, la preparació ja està a punt per ser observada al microscopi.
Amb una mica de paciència hi veuràs, gairebé com si fossin una mena de cremalleres, unes cèl·lules molt allargades (que són els vasos conductors de la saba), les parets de cel·lulosa de les quals tenen uns reforços d’una substància molt dura, anomenada lignina, en forma d’anells o en espiral.
1. La cèl·lula eucariota
2.Les membranes cel·lulars
3.El citoplasma: sistemes de sosteniment i de transport
4.El citoplasma: orgànuls funcionals
5.L’origen de la cèl·lula eucariota
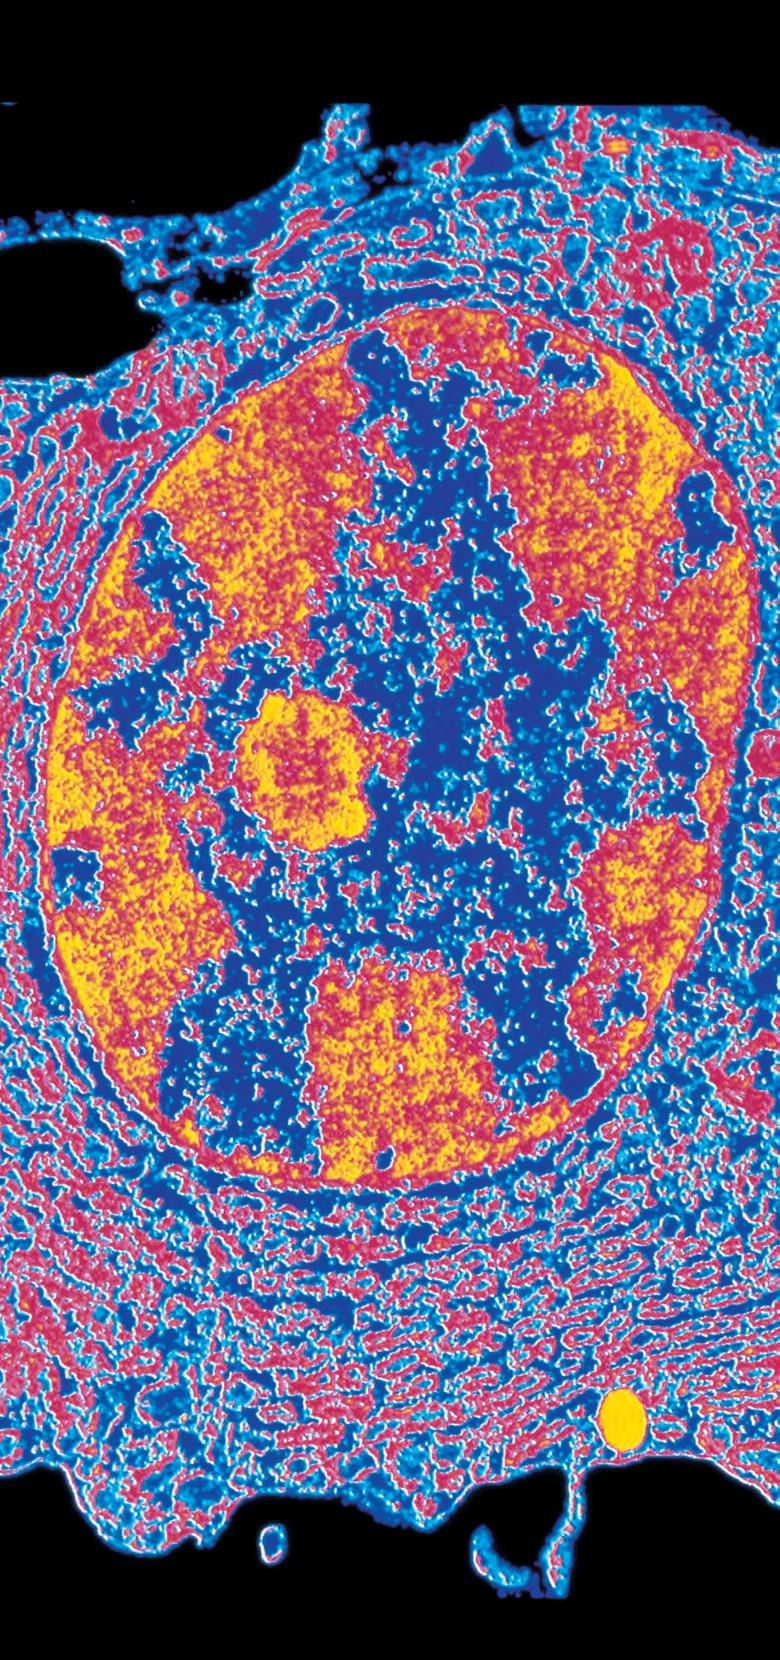
Fragment de cèl·lula eucariota humana (50000x).
Els arqueobacteris o bacteris metanogènics i la resta dels bacteris tenen una estructura cel·lular simple, sense nucli. Solen ser organismes unicel·lulars i tan sols alguns formen agrupacions multicel·lulars. La resta dels organismes són formats per cèl·lules eucariotes, les quals tenen un nucli ben diferenciat i una complexitat molt més gran que les cèl·lules procariotes. Tots els organismes pluricel·lulars són eucariotes, presenten diferents tipus cel·lulars i s’agrupen en quatre regnes: protoctistos, fongs, vegetals i animals. Els fòssils de cèl·lules eucariotes més antics que es coneixen es remunten a uns 1400 milions d’anys.
De la mateixa manera que la física i la química arriben, mitjançant l’anàlisi experimental, a trobar els elements minerals que entren a formar part dels cossos químics, quan es volen conèixer els fenòmens de la vida en tota la seva complexitat, cal anar al més recòndit de l’organisme i analitzar els òrgans i els teixits; cal arribar fins als elements orgànics.
CLAUDE BERNARD, Lliçons de patologia experimental (1879)
En la cèl·lula eucariota, s’hi diferencien tres parts: la membrana plasmàtica, el citoplasma i el nucli
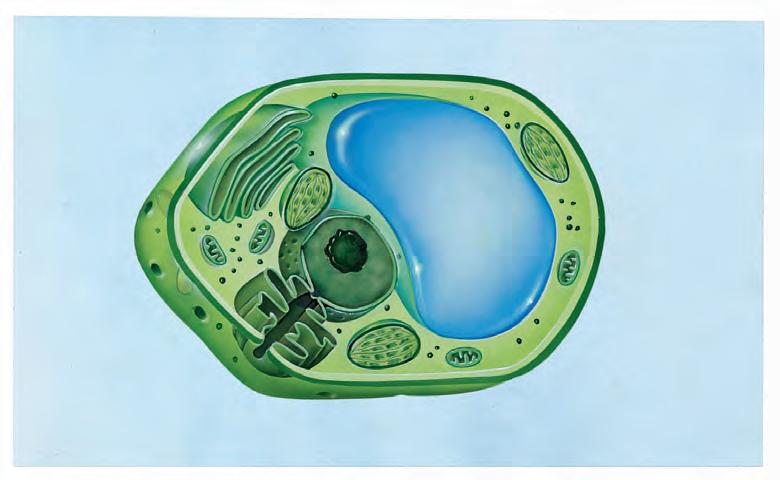
Tot i que presenten una estructura general molt semblant, hi ha algunes diferències apreciables entre la cèl·lula animal i la vegetal. En la vegetal, la membrana cel·lular o plasmàtica és embolcallada per una paret cel·lular resistent. Exclusius de certes cèl·lules vegetals són els plastidis, un grup dels quals, els cloroplastos, fa la fotosíntesi. El centre cel·lular o centrosoma, en canvi, és característic únicament de la cèl·lula animal.
Entre els aspectes que defineixen la cèl·lula eucariota, destaquen els següents:
– El material genètic es troba embolcallat per una membrana que el separa del citoplasma. Aquest material és format per cromatina, constituïda per ADN i per proteïnes del grup de les histones, i durant la divisió cel·lular s’organitza en forma de cromosomes. – El citoplasma presenta un conjunt de filaments i microtúbuls, el citoesquelet, que dóna suport i forma a la cèl·lula i permet una gran mobilitat de les substàncies i dels orgànuls cel·lulars. Aquest citoesquelet ha permès, a més, un creixement més accentuat de la cèl·lula eucariota.
– En el citoplasma, hi ha una gran quantitat d’orgànuls que desenvolupen funcions diverses: els mitocondris són els productors d’energia; els peroxisomes actuen com a agents antioxidants; els cloroplastos, exclusius de la cèl·lula vegetal, s’ocupen de la fotosíntesi. Per la seva banda, els ribosomes són els centres de síntesi de les proteïnes.
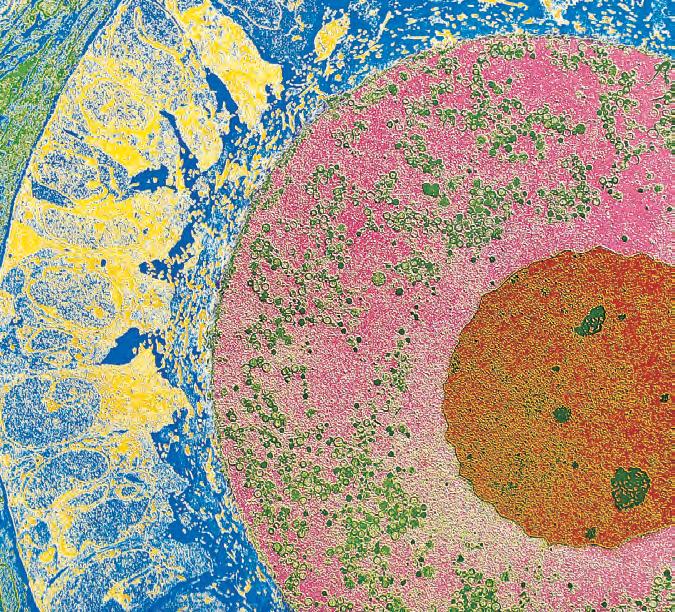
Òvul vist al microscopi electrònic de transmissió. S’hi aprecien bé el nucli (vermell), el citoplasma (rosa), els mitocondris (verds) i les glicoproteïnes (grogues i blaves) que envolten el citoplasma i formen la zona pel·lúcida (1350x).
La cèl·lula eucariota: un gran avenç evolutiu
La biosfera estaria plena de procariotes si no s’hagués produït un fet extraordinari: l’aparició d’una cèl·lula pertanyent a un tipus estructural força diferent: la cèl·lula eucariota, és a dir, amb un nucli autèntic. Les conseqüències d’aquest fenomen van marcar l’inici d’una nova època.
Tots els organismes pluricel·lulars són constituïts per cèl·lules eucariotes, que presenten una complexitat molt més gran que les procariotes. Si no haguessin aparegut les cèl·lules eucariotes, no existiria l’extraordinària varietat d’animals, de vegetals, de fongs i de protozous que hi ha en el nostre planeta i tampoc no existiria l’ésser humà. Amb tota probabilitat, les cèl·lules eucariotes es van originar a partir d’avantpassats procariotes. No han sobreviscut representants de les formes intermèdies, ni s’han conservat fòssils que proporcionin cap pista directa. Únicament podem estudiar el resultat eucariota final, realment diferent de qualsevol procariota.
Amb les eines de la biologia moderna, s’han pogut descobrir relacions evidents entre certes característiques de les cèl·lules eucariotes i les procariotes, i s’ha arribat a comprendre, d’aquesta manera, el procés mitjançant el qual les primeres es van originar a partir de les segones.
CHRISTIANDE DUVE, La cèl·lula viva
Comparació entre la cèl·lula vegetal i la cèl·lula animal
Cèl·lula vegetal
– Té una paret cel·lular grossa, rígida i formada majoritàriament per cel·lulosa, que cobreix la membrana plasmàtica.
– Hi ha presència de plastidis, especialment els cloroplastos, on té lloc la fotosíntesi.
– Té un gran volum vacuolar, especialment en les cèl·lules adultes.
– No té paret cel·lular.
Cèl·lula animal
– No té plastidis.
– Els vacúols no hi ocupen un volum citoplasmàtic important.
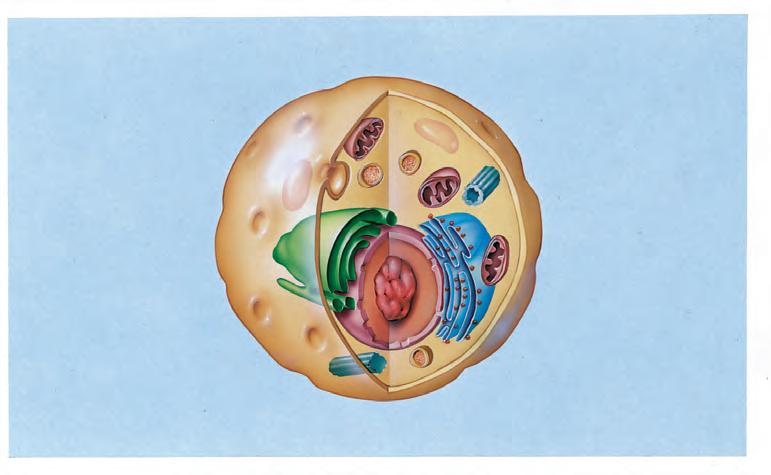
Totes les cèl·lules eucariotes presenten una organització molt complexa que es pot comparar amb una ciutat ben administrada. Tal vegada, el fet més notable és que la cèl·lula, igual que la ciutat, presenta una coordinació de les activitats en compartiments especialitzats. En les cèl·lules, aquests compartiments són envoltats per membranes i reben el nom d’orgànuls membranosos. Un breu passeig per alguns d’aquests compartiments pot començar per la membrana plasmàtica, la qual protegeix la cèl·lula al mateix temps que permet que hi entrin nutrients i que en surtin materials diversos.
Un compartiment clau de l’interior de la cèl·lula és el reticle endoplasmàtic, que funciona com una màquina de fabricar proteïnes, components fonamentals de la cèl·lula. Les proteïnes acabades de sintetitzar es transporten a un altre compartiment cel·lular, el complex de Golgi, veritable sistema d’emmagatzematge i distribució de la cèl·lula.
Els lisosomes són el centre de reciclatge de les cèl·lules: degraden les proteïnes «velles» i les que procedeixen de l’exterior per utilitzar-ne de nou els components.
De la mateixa manera que les ciutats necessiten centrals energètiques per obtenir l’energia per al seu funcionament, els mitocondris són les centrals energètiques de les cèl·lules on se sintetitza l’ATP, la «moneda» energètica cel·lular.
Igual que l’ajuntament de la ciutat és el lloc on es prenen les decisions, el nucli és el centre de govern de la cèl·lula, on s’emmagatzema la informació cel·lular i d’on surten les instruccions que la cèl·lula ha de complir per créixer i reproduir-se.
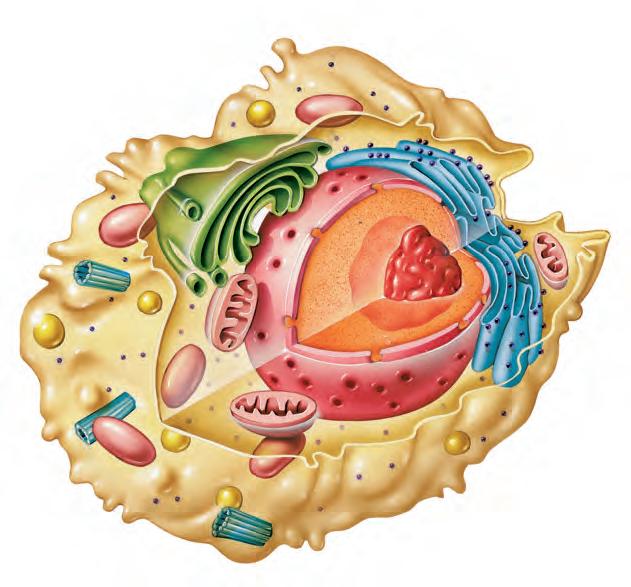
La membrana plasmàtica, el nucli i el citoplasma són les parts fonamentals de la cèl·lula. En el citoplasma de la cèl·lula eucariota destaca la presència dels orgànuls cel·lulars, cada un dels quals té funcions específiques.
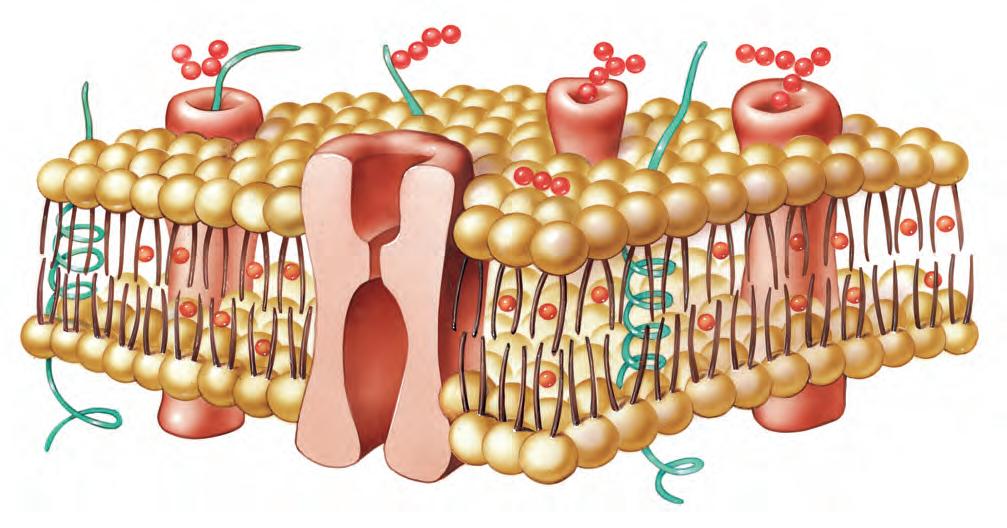
Una de les característiques de tota cèl·lula és la presència d’una membrana, la membrana plasmàtica, que en separa el contingut o citoplasma de l’exterior. La membrana plasmàtica té una funció doble: d’una banda, actua com a barrera o separació entre el citoplasma i el medi extracel·lular; i, de l’altra, fa possible el bescanvi de matèria, d’energia i d’informació entre tots dos medis.
2.1.La composició i l’estructura de les membranes cel·lulars
La microscòpia electrònica i les modernes tècniques d’anàlisi bioquímica han fet possible conèixer amb força detall l’estructura molecular de la membrana, la qual té un gruix d’entre 7 nm i 10 nm.
La membrana cel·lular és formada pels elements següents:
– Una bicapa lipídica formada per fosfoglicèrids (cefalina, lecitina, etc.), altres fosfolípids i colesterol. En aquesta bicapa, les cues hidrofòbiques dels fosfolípids es disposen cap a l’interior, mentre que els extrems hidrofílics es disposen cap a l’exterior.
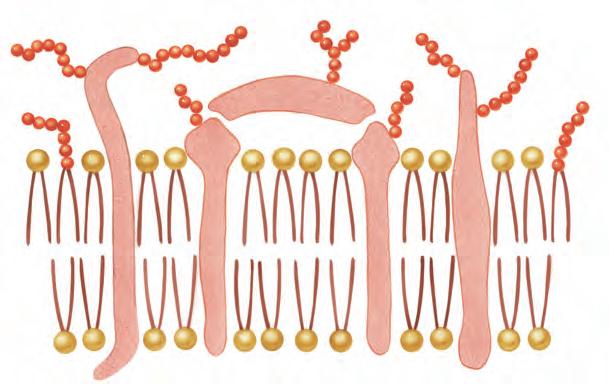
– Dos tipus de proteïnes: les integrals, que formen la transmembrana o part estructural de la membrana, i les proteïnes associades, situades a la superfície de la bicapa i lligades dèbilment als fosfolípids. Per damunt dels fosfolípids i de les proteïnes sobresurten, de la cara externa de la membrana, cadenes d’oligosacàrids (que formen part de glicoproteïnes o bé de glicolípids).
A la temperatura normal de la cèl·lula, la bicapa lipídica es comporta com un fluid; per tant, les proteïnes i els fosfolípids es poden desplaçar lateralment de manera que, tal com van proposar S. Jonathan Singer i Garth Nicolson l’any 1972, la membrana plasmàtica té una estructura dinàmica en mosaic fluid. D’altra banda, se sap que les membranes dels orgànuls cel·lulars (mitocondris, reticle endoplasmàtic, cloroplastos, etc.) i l’embolcall nucleic tenen una estructura molt similar a la de la membrana plasmàtica. És per això que s’ha formulat el concepte de membrana unitària, relatiu a les diverses membranes cel·lulars.
La membrana plasmàtica d’algunes cèl·lules es troba recoberta externament per altres estructures, com ara la paret cel·lular o el glicocàlix.
La bicapa de fosfolípids constitueix la matriu principal de la membrana. Gràcies a la bicapa lipídica, la membrana presenta una permeabilitat selectiva a les molècules hidrosolubles i es fa permeable a les molècules hidròfiles i polars. Les proteïnes actuen com a receptors de molècules externes a la cèl·lula, com a receptors d’informació (capten els senyals extracel·lulars) i com a marcadors específics en els processos immunitaris; a més, catalitzen i fan possible el transport d’ions i de determinades molècules a través de la bicapa.
Les membranes biològiques no són impermeables. A través de les membranes, es produeix un intercanvi continu de molècules i d’ions entre el citoplasma i el medi extracel·lular. Hi ha dos factors fisicoquímics que condicionen el transport de les substàncies a través de les membranes:
a) El gradient de concentració, o diferència de concentració entre una banda de la membrana i l’altra, el qual fa que les molècules tendeixin a desplaçar-se cap al medi on la concentració sigui inferior, fins que aquesta s’iguali.
b) El gradient elèctric, o diferència de potencial elèctric entre les dues cares de la membrana, el qual intervé en el transport d’ions, com ara Na+, K+, Cl–, etc.
Les membranes biològiques són barreres molt selectives, que imposen a cada substància un balanç positiu o negatiu segons les necessitats de la cèl·lula, per tal de mantenir-ne constant el medi intern. Les membranes presenten permeabilitat selectiva, i permeten l’intercanvi de substàncies a través de quatre procediments bàsics:
Model de membrana plasmàtica animal.
Medi hipotònic: turgència
Nucli Vacúol
Paret cel·lular
Medi hipertònic: plasmòlisi
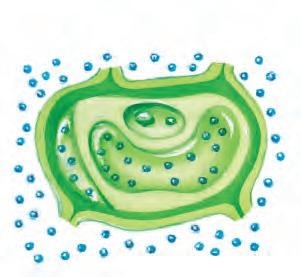
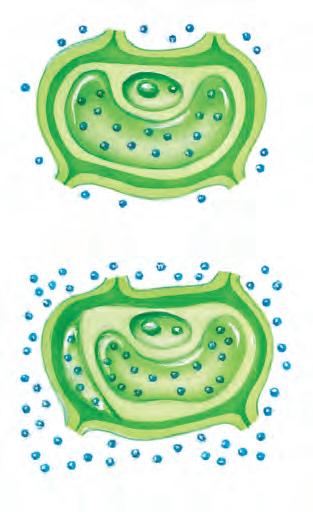
Gràcies a la permeabilitat selectiva de la membrana, l’aigua es mou per osmosi des d’on hi ha una concentració d’aigua més gran (o una concentració de solut més petita) fins on hi ha una concentració d’aigua més petita (o una concentració de solut més gran). Quan el medi exterior és hipotònic respecte a la cèl·lula vegetal, aquesta s’infla fins a comprimir-se contra la paret vegetal: turgència. En canvi, quan el medi exterior és hipertònic respecte a la cèl·lula vegetal, aquesta perd aigua i es contrau: plasmòlisi.
– La difusió simple. Algunes substàncies penetren, o surten, lliurement a través de la membrana a favor del gradient elèctric o de concentració; és el cas de l’aigua, l’O2, el CO2, la diversitat d’ions inorgànics i d’algunes molècules petites com ara l’alcohol etílic o la urea.
– La difusió facilitada. Igual que en el cas anterior, es tracta d’una difusió passiva, sense dispendi d’energia, a favor del gradient, però que es beneficia de l’existència d’uns transportadors especials, les permeases. Aquestes són unes proteïnes de la membrana que s’uneixen temporalment a les molècules per passar, de manera anàloga, a la unió de l’enzim amb el substrat. Així, la glucosa-permeasa és una proteïna de membrana que regula el pas de la glucosa cap al citoplasma. Moltes altres molècules hidròfiles, com ara els aminoàcids, passen la membrana d’aquesta manera.
– El transport actiu. Aquesta mena de transport exigeix consum d’energia, aportada generalment en forma d’ATP. És independent dels gradients elèctrics i de concentració, i fins i tot, com en el cas de la denominada bomba de sodi / potassi, pot actuar en contra de gradients de concentració elevada. Efectivament, la cèl·lula bomba contínuament ions Na+ cap a l’exterior, i ions K+ cap a l’interior, amb la qual cosa es crea un medi intracel·lular de concentració alta en K+ i baixa en Na+, i un medi extracel·lular immediat de característiques inverses. El transport actiu és la via ordinària d’ingrés a l’interior de la cèl·lula de les molècules i dels ions de massa molecular elevada.
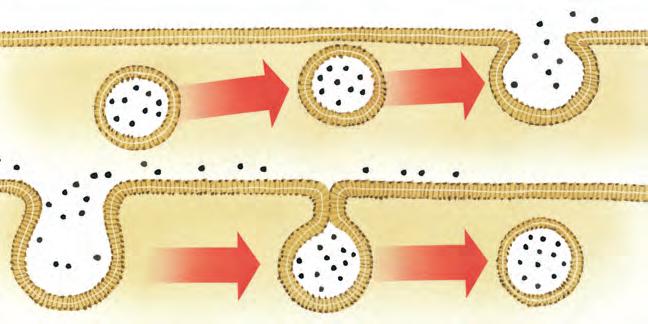
– L’exocitosi i l’endocitosi. Les proteïnes de transport, que permeten el pas de petites molècules polars a través de les membranes, no poden transportar macromolècules, com ara proteïnes, polinucleòtids o polisacàrids. Els mecanismes que utilitzen les cèl·lules per ingerir i secretar aquestes macromolècules pressuposen la formació i fusió, seqüencial, de vesícules envoltades de membrana. El procés s’anomena exocitosi quan es tracta de secretar substàncies cap a l’exterior, i endocitosi quan la cèl·lula capta material mitjançant la invaginació de la membrana plasmàtica. Aquest últim procés comprèn la pinocitosi i la fagocitosi.
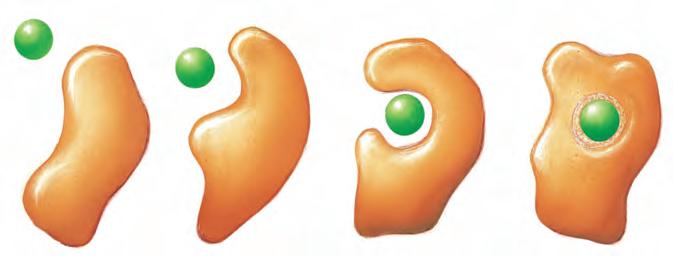
Esquema de la fagocitosi.
El material nou és envoltat per la membrana i és englobat juntament amb una pel·lícula de líquid extracel·lular, amb la qual cosa es formen a l’interior de la cèl·lula petits vacúols. Aquest fenomen s’anomena pinocitosi quan es tracta de la captació de gotetes de líquid o de molècules de diàmetre inferior als 150 nm; en canvi, quan les partícules així atrapades són sòlides i molt grans, el fenomen rep el nom de fagocitosi
La fagocitosi és característica de les amebes i de tota mena de cèl·lules ameboides (com ara els leucòcits), les quals envolten i engloben amb els pseudòpodes les partícules de matèria orgànica o els microbis que en constitueixen l’aliment.
Una vegada a l’interior de la cèl·lula, els lisosomes propers a les partícules ingerides aboquen els enzims digestius i es forma el vacúol digestiu. Aleshores, s’hi produeix la digestió del seu contingut fins a reduir-lo a substàncies assimilables i a restes indigeribles. Aquestes últimes són expulsades a l’exterior després de la migració del vacúol fins a la membrana plasmàtica, en un procés invers d’exocitosi.
Les amebes i altres cèl·lules nues desproveïdes de qualsevol mena de paret externa no tenen una forma determinada. El seu perímetre és ben deformable i el seu contorn varia en funció del moviment ameboide que presenten, el qual es deu als canvis de viscositat del citoplasma, que passa de sol a gel, o a la disminució de la tensió superficial. Així, en les amebes, mentre que la zona més interna del citoplasma (endoplasma) és fluida, la part perifèrica és més gelificada. En una ameba en moviment, la part posterior sofreix una contracció que desplaça l’endoplasma, en fase de sol, cap endavant, i provoca així la formació d’una prolongació citoplasmàtica o pseudòpode. El moviment permet a les amebes desplaçar-se i capturar l’aliment.
2.4. Les cobertes de secreció
En els organismes pluricel·lulars, les cèl·lules han d’estar unides d’alguna manera, per facilitar-ne la coordinació. En les plantes superiors, les cèl·lules es connecten mitjançant ponts citoplasmàtics o plasmodesmes, els quals travessen les parets de cel·lulosa secretada per les cèl·lules vegetals mateixes i formen una mena de carcassa dividida en cambres amb les cèl·lules disposades en el seu interior.
En canvi, les cèl·lules de la major part dels animals no tenen parets rígides i es troben unides per una xarxa relativament laxa de grans molècules orgàniques.
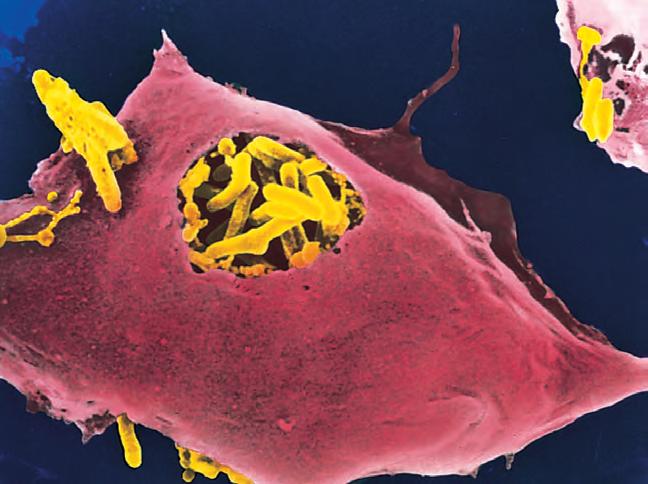
Per ingerir macromolècules i partícules grans, les cèl·lules les envolten progressivament amb una porció de membrana plasmàtica que es converteix en una vesícula intracel·lular. Aquest procés rep el nom d’endocitosi. Es distingeix la pinocitosi, o ingestió de fluids i soluts de menys de 150 nm de diàmetre, i la fagocitosi, o captura de partícules més grans.
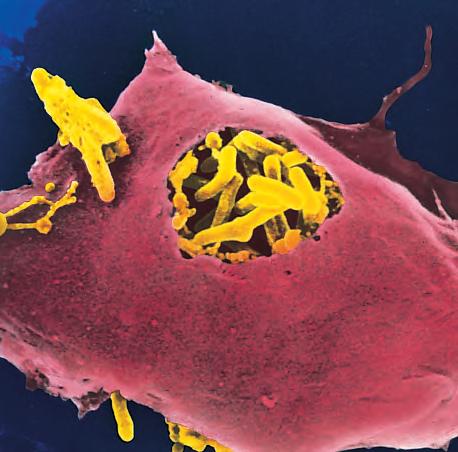
Macròfag fagocitant bacteris de la tuberculosi.
Les glicoproteïnes i els glicolípids que s’estenen més enllà de la membrana plasmàtica constitueixen la coberta cel·lular o glicocàlix.
Coberta cel·lular (glicocàlix)
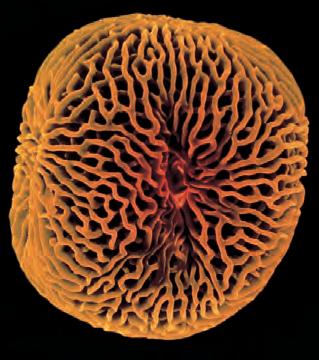
Paret cel·lular d’un gra de pol·len vist al microscopi electrònic de rastreig.
Glicoproteïna transmembrana
Glicoproteïna absorbida
Proteoglicà transmembrana
Glicolípid
Matriu extracel·lular
Aquesta xarxa laxa i poc definida de grans molècules en què es troben immerses les cèl·lules animals, i que a través de la membrana plasmàtica es comunica amb el citoesquelet de les cèl·lules, s’anomena matriu extracel·lular. En moltes cèl·lules eucariotes, es pot visualitzar, més enllà de la membrana plasmàtica i utilitzant colorants adequats, una zona perifèrica que conté glicoproteïnes i glicolípids, la qual rep el nom de coberta cel·lular o glicocàlix. Algunes d’aquestes molècules són components de la membrana, de manera que és difícil delimitar on acaba la membrana plasmàtica i on comença la matriu extracel·lular.
Totes aquestes estructures de la superfície de les cèl·lules animals intervenen en els processos defensius i immunitaris de la cèl·lula, en l’absorció de molècules i en les unions cel·lulars per formar teixits.
Les cèl·lules de les plantes tenen la membrana plasmàtica recoberta per una elaborada matriu extracel·lular, la paret cel·lular. Es tracta d’un embolcall ben definit i rígid format per fibres de cel·lulosa englobades en una matriu d’altres polisacàrids i proteïnes, entre els quals hi ha hemicel·lulosa, pectina, gomes, mucílags, etc. No es tracta d’un estoig inert de la cèl·lula, sinó que li dóna forma i resistència. A més, permet que hi hagi una forta pressió hidrostàtica interna, o turgència, sense que això comporti la ruptura de la membrana plasmàtica.
La paret de cel·lulosa és, de fet, una estructura dinàmica que intervé en la nutrició i en el desenvolupament de la mateixa cèl·lula. La composició i l’aparença de la paret de cel·lulosa es modifiquen en els diferents tipus de cèl·lules vegetals, de manera que aquesta paret cellular secundària permet l’especialització cel·lular i la diversitat de funcions.
2.1. Els organismes de la biosfera actual s’agrupen en cinc regnes. Indica quins són i el tipus de cèl·lules que els formen (procariota o eucariota). Consultant un diccionari o una enciclopèdia, indica l’etimologia dels termes procariota i eucariota. Digues què són els arqueobacteris?
2.2. Què és la cromatina? Quines biomolècules la formen?
2.3. Explica les diferències entre el citoplasma i el citosol. Defineix què és el citoesquelet i enumera’n les funcions.
2.4. Digues si la membrana plasmàtica és rígida, impermeable, fluïda, lipídica, proteica, unitària. En cada cas, justifica la resposta.
2.5. De quina manera estan relacionades les cèl·lules procariotes i les eucariotes segons la teoria de l’endosimbiosi?
2.6. Enumera els components dels fosfolípids que formen la membrana plasmàtica. Quin altre tipus de lípid és component de la membrana plasmàtica?
2.7. Escriu una definició de paret cel·lular i indica quins són els seus components, quina funció desenvolupa i quines cèl·lules s’hi troben.
2.8. El pas de substàncies des de l’exterior cap al citoplasma, i viceversa, es realitza a través de la membrana cel·lular.
a) Explica quines característiques permeten a la membrana plasmàtica de realitzar aquesta funció.
b) Osmosi, difusió i transport actiu són alguns dels mecanismes d’intercanvi. Comenta en què consisteix cadascun d’aquests mecanismes i a quin tipus de substàncies faciliten el pas.
c) Identifica els processos que es troben representats en els esquemes de sota. Defineix-los i explica’n la funció.
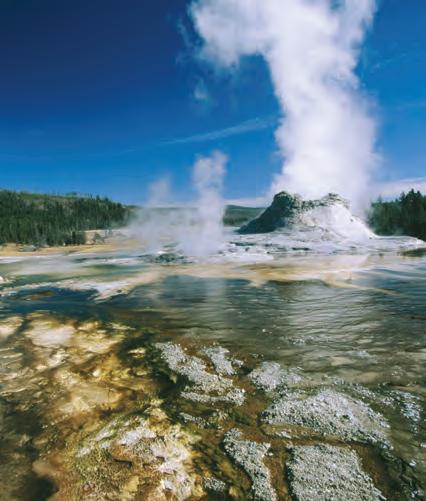
Guèiser en erupció, al Parc Nacional de Yellowstone (Estats Units). En aquests ambients termals, s´hi poden trobar freqüentment alguns organismes procariotes molt senzills.
2.9. Els pètals de les flors tenen coloracions molt vistoses perquè emmagatzemen pigments en els grans vacúols de les cèl·lules que els formen. Imagina’t que has fet una preparació microscòpica amb un trosset de pètal molt fi, de color llampant, i que has posat una gota d’aigua destil·lada entre el portaobjectes i el cobreobjectes. Fes un dibuix del que veuries si observessis la preparació al microscopi òptic. Assenyala-hi com serien les cèl·lules i quines estructures típiques hi observaries.
Imagina’t ara que fas una altra preparació amb el mateix pètal, però entre el portaobjectes i el cobreobjectes hi poses una gota de solució salina al 10%, en lloc d’aigua destil·lada. Dibuixa el que observaries si miressis aquesta nova preparació amb el mateix microscopi i formula una hipòtesi que expliqui els possibles canvis respecte a les estructures anteriors.
2.10. Indica si són certes o falses les frases següents:
a)Les cèl·lules eucariotes es reprodueixen per mitosi.
b)El transport actiu a través de la membrana plasmàtica es produeix a favor del gradient elèctric.
c)La plasmòlisi designa la pèrdua d’aigua i la contracció de la cèl·lula vegetal quan es troba en un medi extern hipertònic.
d)Les permeases són proteïnes del citoplasma que intervenen en els processos de respiració cel·lular.
e)La turgència és el procés invers a la plasmòlisi.
f)Mitjançant la pinocitosi entren a la cèl·lula les partícules sòlides.
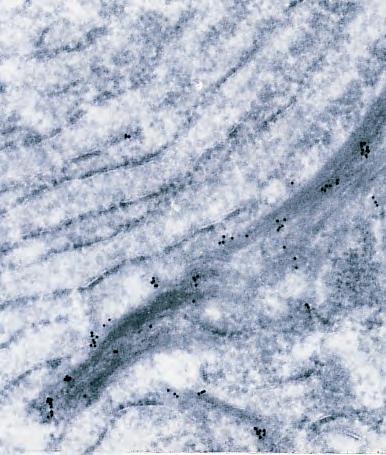
El citoplasma és la porció de cèl·lula limitada per la membrana plasmàtica i per la membrana nuclear. Inclou el citosol i els orgànuls citoplasmàtics.
El citosol, o medi fonamental de la cèl·lula, és una dissolució col·loïdal aquosa, gelatinosa, formada per proteïnes, per monòmers essencials (aminoàcids, glucosa, àcids grassos, nucleòtids), per molècules energètiques (per exemple l’ATP), per ions diversos, etc. Aquesta composició es manté constant i en equilibri gràcies al transport que es produeix a través de la membrana plasmàtica. En el seu interior, es produeixen moviments, anomenats ciclosi, que redistribueixen els materials.
En el citosol, es desenvolupen importants processos metabòlics, com ara la glicòlisi, la fermentació làctica, la síntesi d’àcids grassos, etc.
3.1. El citoesquelet: el suport i la forma de la cèl·lula
El citoesquelet és format per filaments i microtúbuls de proteïna que constitueixen un reticle flexible i en renovació contínua. Reforça el citoplasma d’algunes cèl·lules, proporciona fixació a diversos orgànuls i intervé en la distribució de la matèria en el citoplasma. Alguns microtúbuls formen els centríols, mentre que certs filaments intervenen en la formació del fus acromàtic durant la divisió cel·lular. Els cilis i flagels de les cèl·lules que en tenen, també són formats per microtúbuls del citoesquelet.
3.2.El reticle endoplasmàtic: la síntesi i el sistema de transport
El reticle endoplasmàtic és un conjunt de conductes i de vesícules aplanades (cisternes) del citoplasma format per una membrana unitària.
Tot i que l’interior del reticle és un únic sac continu, per raons expositives s’hi distingeixen dues parts: el reticle rugós i el reticle llis. El primer presenta abundants ribosomes a la superfície externa, es localitza en les proximitats del nucli i està relacionat amb la membrana nuclear. La seva funció és la de recollir, emmagatzemar i transportar les proteïnes sintetitzades en els ribosomes. En canvi, el reticle endoplasmàtic llis intervé en la síntesi de lípids i en el transport de moltes biomolècules. Es desprenen del reticle endoplasmàtic rugós abundants vesícules amb proteïnes que van a parar al complex de Golgi, on aquestes molècules experimenten les darreres modificacions.
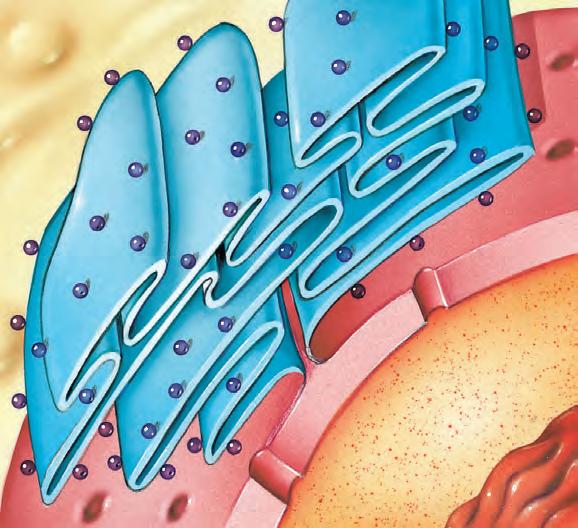
Els ribosomes són orgànuls esfèrics, d’entre 15 i 25 nm de diàmetre, formats per molècules d’àcid ribonucleic ribosòmic (ARNr) i per proteïnes. Es troben dispersos pel citoplasma o adossats a la paret externa del reticle endoplasmàtic rugós. Una petita fracció de ribosomes es troba a la matriu dels mitocondris i a l’estroma dels cloroplastos. Sovint els ribosomes es presenten en grups, anomenats polisomes o poliribosomes, que s’encarreguen de sintetitzar una mateixa proteïna específica simultàniament.
Descàrrega a l’exterior per exocitosi
Grànuls de secreció
Fragmentació dels sàculs
Dictiosomes o sàculs del complex de Golgi
Formació per fusió de vesícules de transició
Secreció de vesícules pel reticle endoplasmàtic
Reticle endoplasmàtic rugós
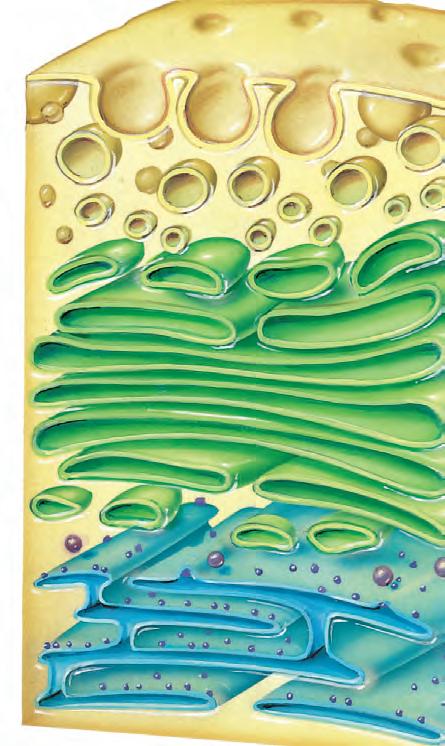
Complex de Golgi i reticle endoplasmàtic.
En els ribosomes és on té lloc la síntesi de les proteïnes que necessita la cèl·lula, mitjançant la unió dels aminoàcids segons una ordenació o seqüència característica de cada proteïna. Les instruccions adequades de com s’ha de produir aquesta síntesi les proporciona l’àcid ribonucleic missatger (ARNm), que porta fragments d’informació genètica transcrita de l’ADN del nucli.
3.4.El complex de Golgi: el sistema de distribució cel·lular
El complex de Golgi és un conjunt de vesícules aplanades de forma discoïdal, o dictiosomes, que es presenten en grups apilats.
Aquests orgànuls s’originen a partir del reticle endoplasmàtic rugós, estan en renovació contínua i acaben formant vesícules de secreció i lisosomes.
El complex de Golgi és un sistema d’emmagatzematge, de maduració i de transport de biomolècules, especialment de les proteïnes que se sintetitzen en els ribosomes. Intervé també en la síntesi de polisacàrids i de glicoproteïnes que actuen com a anticossos.
Del complex de Golgi es desprenen vesícules plenes de proteïnes, les quals o bé són exportades a l’exterior de la cèl·lula (vesícules de secreció), o bé als lisosomes, on faran funcions d’enzims digestius.
Els vacúols són vesícules que es formen a partir de fragments de reticle endoplasmàtic o del complex de Golgi, o per invaginacions de la membrana plasmàtica, i que tenen com a funció principal emmagatzemar substàncies (sals minerals, proteïnes, àcids grassos, etc.).
Alguns vacúols fan funcions digestives (quan s’hi aboquen els enzims hidrolítics dels lisosomes), i altres intervenen en la regulació de la pressió osmòtica de la cèl·lula variant-ne el contingut en aigua (vacúols pulsàtils o contràctils). Malgrat que es troben en tot tipus de cèl·lules eucariotes, els vacúols són especialment abundants a les cèl·lules vegetals, on poden arribar a ocupar una part important del volum cel·lular. El conjunt de vacúols d’una cèl·lula s’anomena vacuoma.
4.1. Els lisosomes: digestió i hidròlisi cel·lular
Els lisosomes són orgànuls esfèrics i molt resistents formats per una membrana entapissada internament per una capa de glicoproteïnes. Contenen molts enzims hidrolítics (hidrolases) que degraden les proteïnes, els lípids, els glúcids i els àcids nucleics fins als monòmers. Aquests orgànuls citoplasmàtics poden hidrolitzar o digerir substàncies d’origen extracel·lular (heterofàgia), incorporades a la cèl·lula per pinocitosi o fagocitosi, o bé substàncies cel·lulars (autofàgia).
La ruptura o l’augment de permeabilitat de la membrana lisosomial pot provocar processos patològics greus.
4.2. Els mitocondris: centrals energètiques de la cèl·lula
Els mitocondris són orgànuls esfèrics o allargats on es produeix l’oxidació dels metabòlits amb alliberament d’energia que serveix per sintetitzar l’àcid adenosinatrifosfòric (ATP), molècula que proporciona l’energia necessària a les altres parts de la cèl·lula.
Un mitocondri és format per una doble membrana que envolta la matriu, formada per aminoàcids, sistemes enzimàtics, ADP, ATP, etc. La part interna de la membrana presenta nombroses invaginacions cap a l’interior, anomenades crestes
Cal destacar dues característiques dels mitocondris:
– Contenen un patrimoni genètic propi, amb ADN, ARN i ribosomes, amb el qual sintetitzen una part de les proteïnes que necessiten.
– S’originen per divisió de mitocondris predecessors, a un ritme diferent del de la divisió cel·lular. Repliquen el seu ADN, que transmeten als mitocondris fills, i tenen, per tant, la seva continuïtat genètica.
Aquestes característiques permeten afirmar, d’acord amb la teoria de l’endosimbiosi, que els mitocondris probablement són descendents modificats de cèl·lules procariotes aeròbies que, juntament amb altres formes «bacterianes», van originar les cèl·lules eucariotes per evolució d’una simbiosi primitiva.
Cloroplast (en fals color) vist a través del microscopi electrònic de transmissió (5000x).
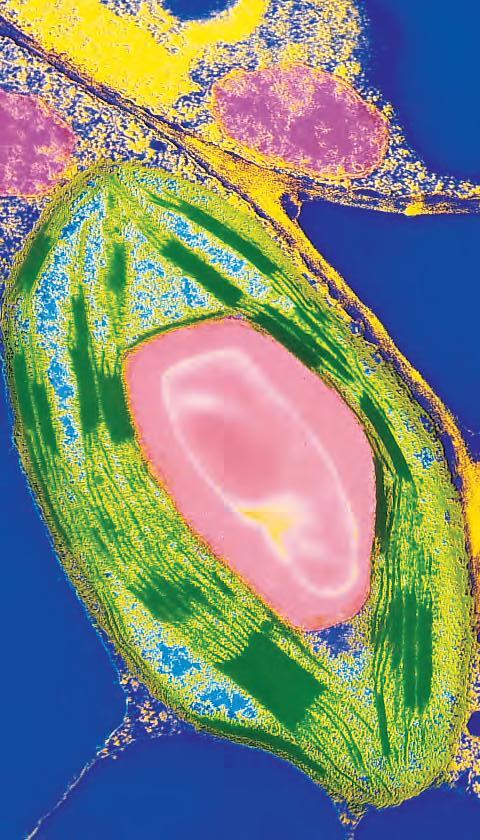
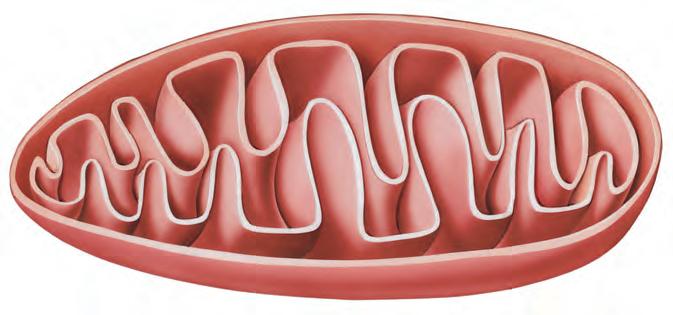
peroxisomes: orgànuls antioxidants
Els peroxisomes, també anomenats microcossos, són orgànuls esfèrics o ovoides constituïts per una membrana que delimita una matriu molt rica en enzims. En aquests orgànuls es desenvolupen reaccions d’oxidació, amb alliberament d’energia en forma de calor. Els microcossos eliminen el peròxid d’hidrogen (agent oxidant molt tòxic per a la cèl·lula) mitjançant un dels enzims que hi ha a la matriu: la catalasa.
Es creu que, com els mitocondris i els cloroplastos, aquests orgànuls provenen d’antigues cèl·lules procariotes que van establir una simbiosi amb les primitives cèl·lules eucariotes. No obstant això, a diferència dels mitocondris i dels cloroplastos, els peroxisomes no tenen material genètic propi.
Els plastidis són orgànuls exclusius de les cèl·lules vegetals que contenen pigments fotosintetitzadors o materials de reserva. Se’n distingeixen tres tipus: cloroplastos, cromoplastos i leucoplastos.
Els cloroplastos són de color verd perquè contenen bàsicament clorofil·la, el principal pigment que intervé en la fotosíntesi. Són especialment abundants en les cèl·lules dels òrgans fotosintetitzadors de les plantes, sobretot en les fulles. Un cloroplast típic és format pel següent:
– Una membrana doble de tipus unitari que regula els intercanvis de materials entre el citoplasma i l’interior del cloroplast.
– Una matriu granulosa o estroma, formada per proteïnes, àcids nucleics, ribosomes i monòmers diversos. Dins l’estroma és on es produeixen les reaccions de la fase obscura de la fotosíntesi: fixació i reducció del CO2 per formar molècules hidrocarbonades.
– Abundants vesícules allargades o tilacoides, que en certes zones apareixen apilades formant els grànums. Contenen la clorofil·la i els enzims responsables de la fase lumínica de la fotosíntesi: fotòlisi de l’aigua (amb alliberament d’electrons, d’ions hidrogen i d’oxigen que s’allibera en forma de gas) i síntesi de NADPH i d’ATP.
Com els mitocondris, els cloroplastos tenen un patrimoni genètic propi, amb ADN, ARN i ribosomes, amb el qual sintetitzen part de les proteïnes. Es divideixen per escissió de manera independent de la divisió cel·lular.
Igual que en el cas dels mitocondris, es creu que els cloroplastos descendeixen d’antics procariotes que es van introduir a les primitives cèl·lules eucariotes i van passar a ser-ne part integrant.
Els cromoplastos són plastidis que a més de clorofil·la contenen altres pigments fotosintetitzadors, com ara carotenoides, de color vermell, i xantofil·les, de color groc.
Els leucoplastos són plastidis sense pigments fotosintetitzadors que actuen com a magatzems de biomolècules, com ara midó (amiloplastos), proteïnes (proteoplastos) i lípids (oleoplastos).
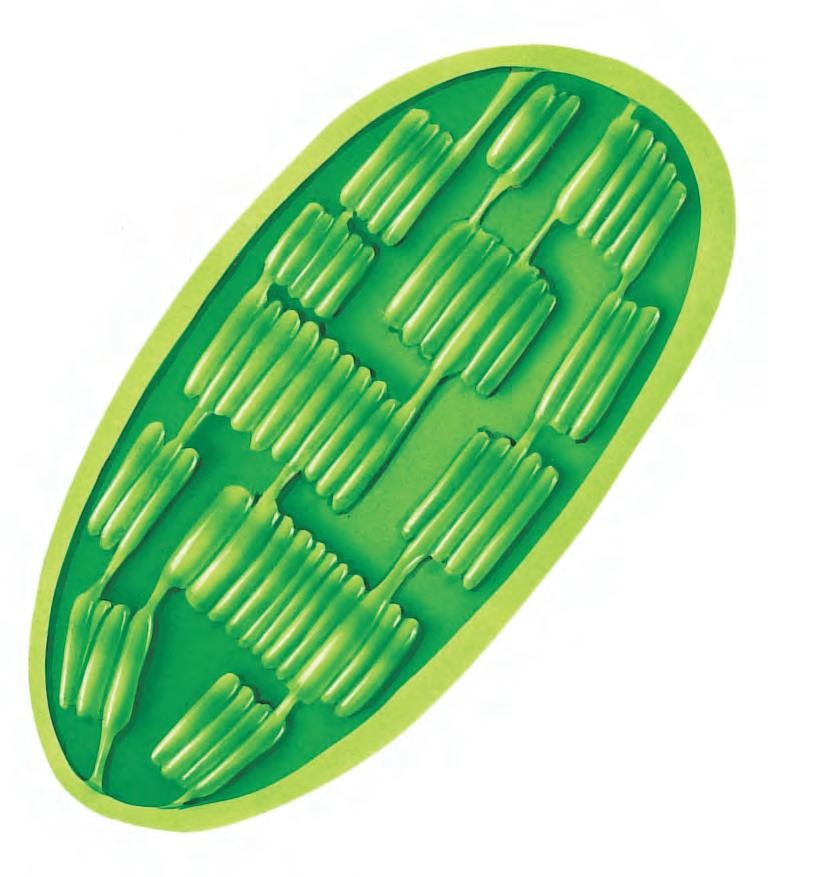
4.5. El centrosoma
El centrosoma és un orgànul de les cèl·lules animals, relacionat amb el citoesquelet i situat prop del nucli. És format per dos corpuscles cilíndrics, els centríols, envoltats per material citoplasmàtic dens, la centrosfera, i una corona de filaments, l’àster. Intervé en la formació del fus acromàtic durant la mitosi.
4.6.Els cilis i els flagels: òrgans propulsors
Els cilis i els flagels són prolongacions citoplasmàtiques filiformes i mòbils, constituïdes per microtúbuls de proteïna envoltats per la membrana plasmàtica. Els cilis són curts i molt nombrosos, mentre que els flagels són més llargs i n’hi ha un o dos.
Es tracta dels òrgans de locomoció de certes cèl·lules, com ara els protozous ciliats i flagel·lats, els espermatozoides o les cèl·lules d’epitelis, i també intervenen en la producció de moviments en el medi extracel·lular, per tal de facilitar la captura de partícules d’aliment. Aquests òrgans propulsors també són presents en cèl·lules immòbils d’organismes pluricel·lulars, com és, per exemple, el cas dels epitelis que recobreixen la tràquea o les trompes de Fal·lopi.
Secció transversal d’un cloroplast.
Protozou ciliat del gènere dels paramecis, amb diversos vacúols digestius i membrana ciliada.
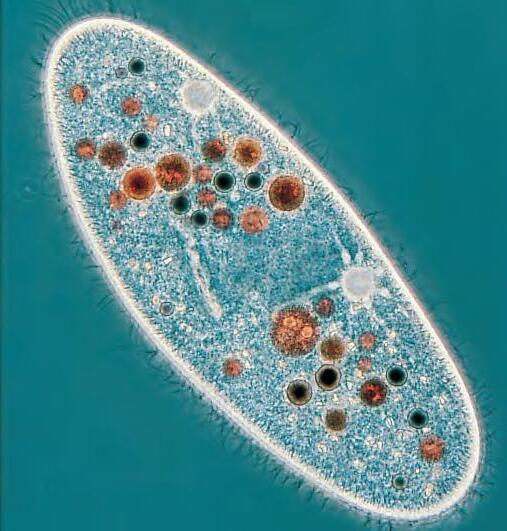
Paret cel·lular Paret cel·lular
ADN
ADN
Durant la major part de la seva història, la Terra ha estat poblada exclusivament per microorganismes procariotes. L’aparició de la cèl·lula eucariota va ser un esdeveniment fonamental que va fer possible la gran diversitat de la biosfera actual.
Membrana nua Membrana nua
Ondulació de la membrana Ondulació de la membrana
Vesícula intracel·lular Vesícula intracel·lular
Els canvis evolutius que van transformar la cèl·lula procariota en eucariota van afectar la membrana, el citoplasma (amb l’aparició de nombrosos orgànuls i estructures amb funcions específiques) i el material genètic, el qual va ser envoltat per una membrana i va originar el nucli. S’accepta que certs components de les cèl·lules eucariotes, per exemple, els mitocondris i els cloroplastos, deriven d’antics microorganismes procariotes que es van introduir a d’altres formes cel·lulars primitives, o van ser fagocitats per aquestes, i van establir-hi relacions simbiòtiques permanents.
Un fenomen important en l’evolució cap a la cèl·lula eucariota va ser l’adquisició de certs orgànuls citoplasmàtics, com ara els mitocondris, i, posteriorment, en una de les línies evolutives, els cloroplastos. Algunes de les característiques d’aquests orgànuls (per exemple, la de tenir un patrimoni genètic propi i la capacitat de reproduir-se independentment de la divisió cel·lular) fan pensar que són descendents modificats de microorganismes procariotes que van penetrar dins les cèl·lules eucariotes, van romandre-hi com a simbionts i van realitzar funcions bàsiques per a la cèl·lula, com ara la producció d’energia en totes les cèl·lules eucariotes (mitocondris) o la fotosíntesi que porten a terme moltes cèl·lules vegetals (cloroplastos).
Un primer pas dels canvis cap a la cèl·lula eucariota va ser l’ondulació i el plegament de la membrana plasmàtica, amb el consegüent augment de la superfície cel·lular i una millora dels intercanvis de materials amb el medi extracel·lular.
El progressiu plegament de la membrana cap a l’interior (invaginacions) va permetre la formació de vesícules tancades a l’interior de la cèl·lula, algunes de les quals compten amb enzims digestius per digerir substàncies. D’aquesta manera, es va poder originar part dels orgànuls del citoplasma de la cèl·lula eucariota (citoesquelet, reticle endoplasmàtic, complex de Golgi, lisosomes, vacúols, etc.).
Seqüència hipotètica de l’evolució que conduí a l’aparició de la cèl·lula eucariota.
Es va ocasionar, doncs, una cèl·lula molt més gran i complexa que qualsevol cèl·lula procariota individual, amb capacitat de flexionar i d’invaginar la membrana i amb un sistema de transport intracel·lular força complicat. Una de les invaginacions de la membrana va donar lloc a una vesícula que contenia l’ADN de la cèl·lula. S’havia originat així, d’acord amb aquesta hipòtesi, el nucli característic de la cèl·lula eucariota.
2.11. Digues què és el ribosoma i explica’n la localització i la funció. Digues també quin és el component fonamental d’aquest orgànul i què és un poliribosoma.
2.12. Quina és la funció del reticle endoplasmàtic llis?
2.13. El dibuix a) que hi ha a la dreta representa alguns dels principals sistemes de membrana del citoplasma. Digues el nom de cada un d’aquests sistemes i explica quines relacions hi ha entre ells.
2.14. Fes una taula que resumeixi les principals característiques que diferencien la cèl·lula vegetal de la cèl·lula animal.
2.15. Què s’entén per vacuoma d’una cèl·lula? Quines cèl·lules el tenen més desenvolupat?
2.16. Digues quines són les funcions del centre cel·lular, dels cilis i dels flagels.
2.17. La il·lustració b) de la dreta mostra unes cèl·lules vegetals vistes a través d’un microscopi òptic, i la c), en canvi, mostra una secció d’un cloroplast vist a través d’un microscopi electrònic. Fes un dibuix esquemàtic d’aquestes dues il·lustracions, assenyala-hi la membrana, els tilacoides i els grànums, i explica’n les funcions. Calcula la longitud real aproximada del cloroplast, tenint en compte que aquesta il·lustració és a 5700x.
2.18. A més dels cloroplastos, esmenta altres tipus de plastidis que es trobin a les cèl·lules vegetals i explica’n la funció. Quins pigments fotosintetitzadors, a més de la clorofil·la, contenen els plastidis?
2.19. Explica breument l’origen de la cèl·lula eucariota.
2.20. Copia les respostes que consideris correctes:
• El centrosoma…
a) …és exclusiu de les cèl·lules vegetals.
b) …és un sistema de transport intracel·lular.
c) …intervé en la divisió cel·lular.
d) …inclou els centríols i la centrosfera.
• Els ribosomes…
a) …contenen ADN propi.
b) …intervenen en la síntesi de l’ARN.
c) …uneixen els aminoàcids per obtenir proteïnes.
d) …no tenen cap de les característiques anteriors.
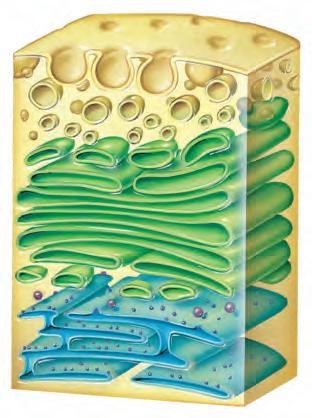
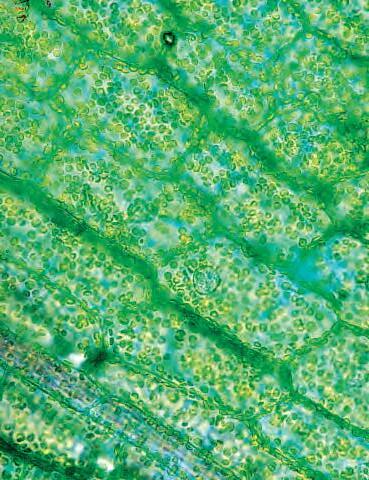
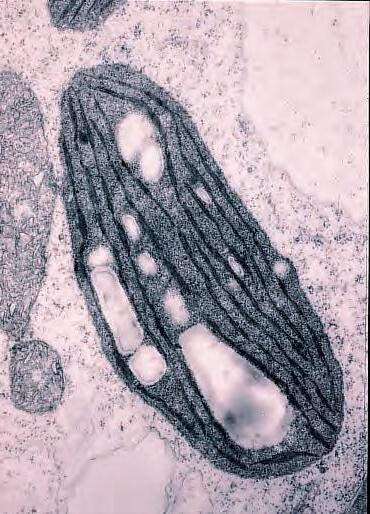
• Els flagels…
a) …són part del sistema digestiu intracel·lular.
b) …són els orgànuls responsables de la mobilitat d’algunes cèl·lules.
c) …són responsables de la captura d’aliment extracel·lular.
d) …pot haver-n’hi un o més.
• L’ADN…
a) …és un component exclusiu del nucli de les cèl·lules eucariotes.
b) …associat a proteïnes forma la cromatina.
c) …és format per nucleòtids amb ribosa.
d) …és un component del nucli i d’alguns orgànuls citoplasmàtics.
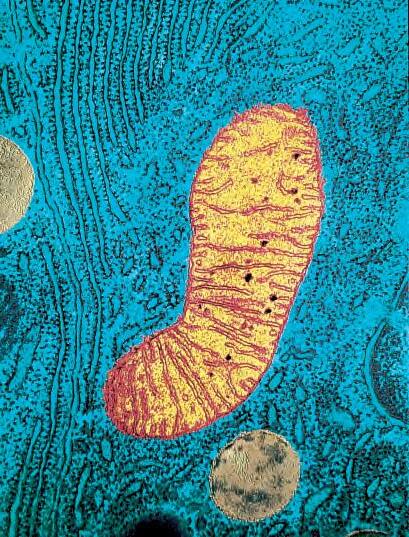
2.21. La il·lustració de l’esquerra és una fotografia d’un mitocondri vist a través d’un microscopi electrònic. Fes un dibuix que representi aquest mitocondri i assenyala-hi la doble membrana, l’estroma i les crestes.
2.22. Relaciona cada paraula o sintagma del primer grup amb el mot del segon grup que li correspon. Primer grup: fotosíntesi, síntesi de proteïnes, conté enzims digestius, conté ADN, respiració cel·lular. Segon grup: nucli, mitocondri, lisosoma, ribosoma, cloroplast.
2.23. Explica com es creu que es van originar les parts de la cèl·lula eucariota següents: reticle endoplasmàtic, nucli, mitocondri i cloroplast.
2.24. En una cartolina gran, dibuixa-hi el contorn d’una cèl·lula, aproximadament circular, amb un radi d’uns 15 centímetres. A continuació, posa a l’interior les diferents parts de la cèl·lula eucariota, amb fotocòpies o dibuixos.
2.25. Talla per un pla equatorial una bola de poliestirè expandit o de suro, la més grossa que trobis, i fes un model de cèl·lula eucariota dibuixant-hi a sobre les seves estructures principals, o enganxant-hi models fets de poliestirè expandit o de suro.
2.26. Els ribosomes i els mitocondris són dos orgànuls citoplasmàtics essencials de la cèl·lula eucariota. Per portar a terme la seva funció, cal que hi penetrin certes molècules.
a) Quines són?
b)Quines biomolècules s’originen en aquests orgànuls i quina és la funció que hi fan?
2.27. Les molècules de la llista que hi ha a continuació es troben a diferents orgànuls de la cèl·lula, els quals desenvolupen funcions importants. Copia la taula següent i completa-la:
Orgànul o macromolècula on es troba Molècula
Hidrolasa
Funcions en les quals intervé
e)Digues si les funcions que realitzen els orgànuls assenyalats amb les lletres A i B tenen lloc tant en el cas d’una cèl·lula animal com en el cas d’una cèl·lula vegetal. Raona la resposta.
2.28. La il·lustració a) del costat representa una activitat fisiològica pròpia de les cèl·lules eucariotes.
a) De quina activitat es tracta?
b) Indica el nom de les estructures assenyalades amb els nombres 1, 2, 6 i 7.
c) Explica la relació entre les estructures 6 i 7.
2.29. La il·lustració b) representa una cèl·lula amb alguns dels seus orgànuls citoplasmàtics.
a)Indica el nom dels orgànuls assenyalats amb les lletres A i B i digues quina funció realitzen a la cèl·lula.
b)Els nombres de l’1 al 9 indiquen les molècules i els altres factors que intervenen en les funcions que realitzen els orgànuls A i B. Escriu el nom que correspon a cada molècula o factor.
c)Digues quin tipus de nutrició té aquesta cèllula. Raona la resposta.
d)Digues si els orgànuls assenyalats amb les lletres A i B es troben en les cèl·lules procariotes. Raona la resposta.
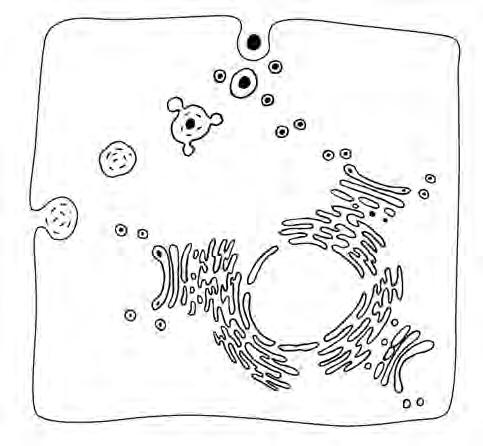
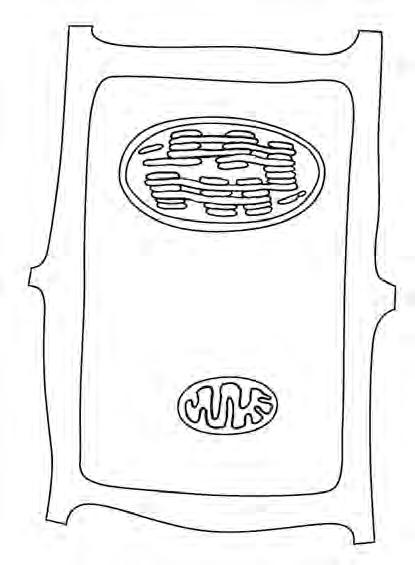
2.30. Digues quines estructures intervenen en…
a)…la motilitat cel·lular;
b)…l’alliberament de grans de secreció;
c)…la divisió de la cèl·lula eucariota;
d)…la síntesi de proteïnes;
e)…la respiració cel·lular;
f)…la digestió intracel·lular;
g)…el suport i la forma cel·lulars.
2.31. Les fotografies a) i b) de peu de pàgina et mostren imatges d’una cèl·lula animal vista al microscopi electrònic. Observa-les i contesta a les preguntes que hi ha a continuació:
a)Estan fetes amb un microscopi electrònic de rastreig o de transmissió? Raona la resposta.
b)Quines són les estructures membranoses (diferents) que hi ha en les fotografies?
c)Quina és la funció d’aquestes estructures?
d)Quina relació funcional tenen ambdues estructures?
e)Amb quines altres parts de la cèl·lula es relacionen?
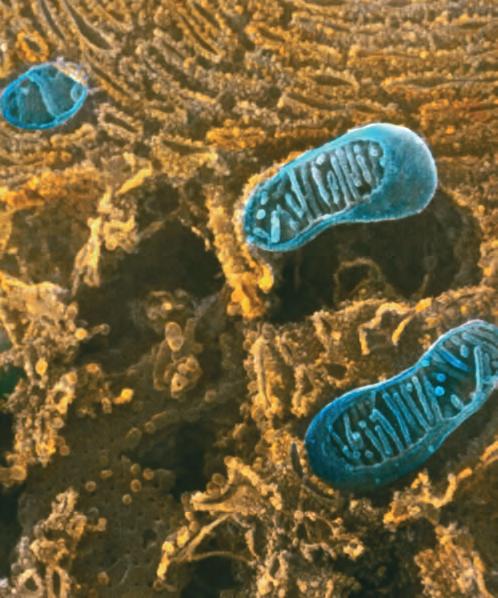
2.32. Digues a quin orgànul cel·lular correspon cadascuna de les afirmacions següents:
a)Modifica algunes molècules i les transporta, dins de vesícules, a altres parts de la cèl·lula o a l’exterior.
b)Produeix el procés de síntesi d’ATP per l’ATPasa.
c)Separa la cèl·lula de l’exterior.
d)Emmagatzema i modifica proteïnes sintetitzades als ribosomes que té adossats.
e)Conté la cromatina.
f)Permet un transport selectiu a l’exterior i a l’interior de les cèl·lules.
g)Conté els enzims necessaris per al cicle de Krebs.
h)Separa les proteïnes i els lípids que rep del reticle endoplasmàtic, en funció de la seva destinació.
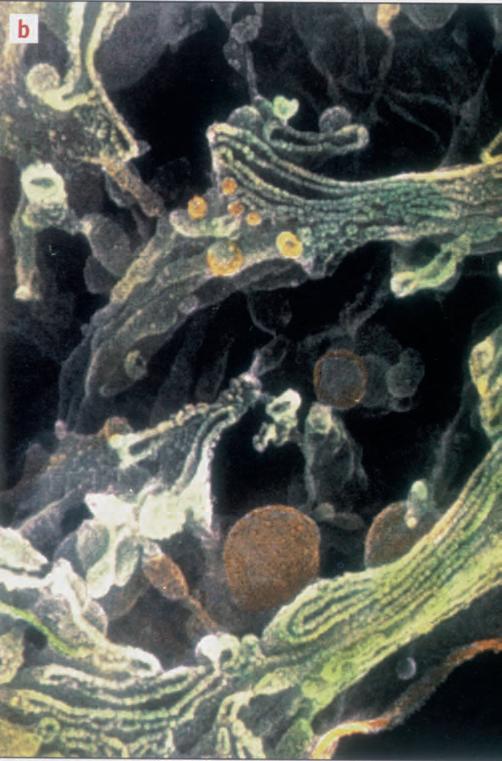
2.33. El dibuix que tens a la dreta et mostra una imatge d’una cèl·lula animal vista al microscopi electrònic de transmissió.
a)Per què podem afirmar que es tracta d’una cèl·lula animal que s’ha fotografiat a través d’un microscopi electrònic?
b)Quins són els orgànuls i les estructures assenyalats amb els nombres de l’1 al 6?
2.34. La fotografia de sota mostra un òvul envoltat d’espermatozoides. Amb un regle, mesura el diàmetre de l’òvul, el diàmetre del cap de l’espermatozoide i la longitud de la cua de l’espermatozoide. Digues quines són les dimensions reals d’aquestes cèl·lules i explica com has fet els càlculs.
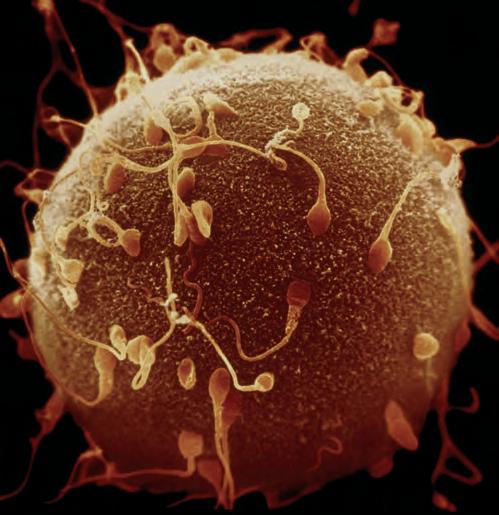
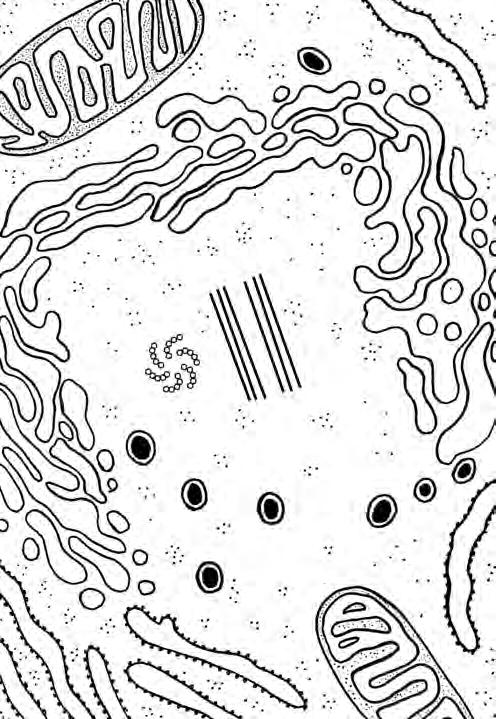
2.36. Copia els textos següents, que fan referència a diverses estructures cel·lulars, i completa’ls amb les paraules adequades:
a) La … és una làmina que separa els medis extracel·lular i intracel·lular. Químicament està constituïda per una bicapa de … en la qual poden inserirse les … . Aquesta làmina presenta a la seva superfície externa unes terminacions glucídiques molt ramificades, que formen el … .
2.35. Els termes següents tenen a veure amb un mateix procés cel·lular: complex de Golgi, endosoma, exocitosi, fagocitosi, lisosoma secundari i lisosoma primari.
Digues de quin procés es tracta, quina significació biològica té i fes-ne un dibuix esquemàtic.
b) El … és l’orgànul que controla i governa totes les funcions cel·lulars. Està constituït per una doble membrana (la part externa és un prolongació del reticle … rugós) que presenta una sèrie de … que comuniquen l’interior d’aquest òrganul amb el … .
c) Els … intervenen en la síntesi de proteïnes. Els podem trobar lliures al citoplasma, sobre les membranes del … i a l’interior dels … i dels … .
2.37. Al microscopi electrònic, les cèl·lules revelen una estructura com la que et mostren les il·lustracions a) i b). Observa-les atentament i contesta a les preguntes següents:
a)De quin tipus de cèl·lula es tracta en cada cas? Per què?
b)Quines són les estructures que només es veuen en un dels dos tipus de cèl·lules?
c)A quina estructura o a quin orgànul corresponen els elements assenyalats a cada cèl·lula?
d)Digues quina funció fa cada un d’aquests elements.
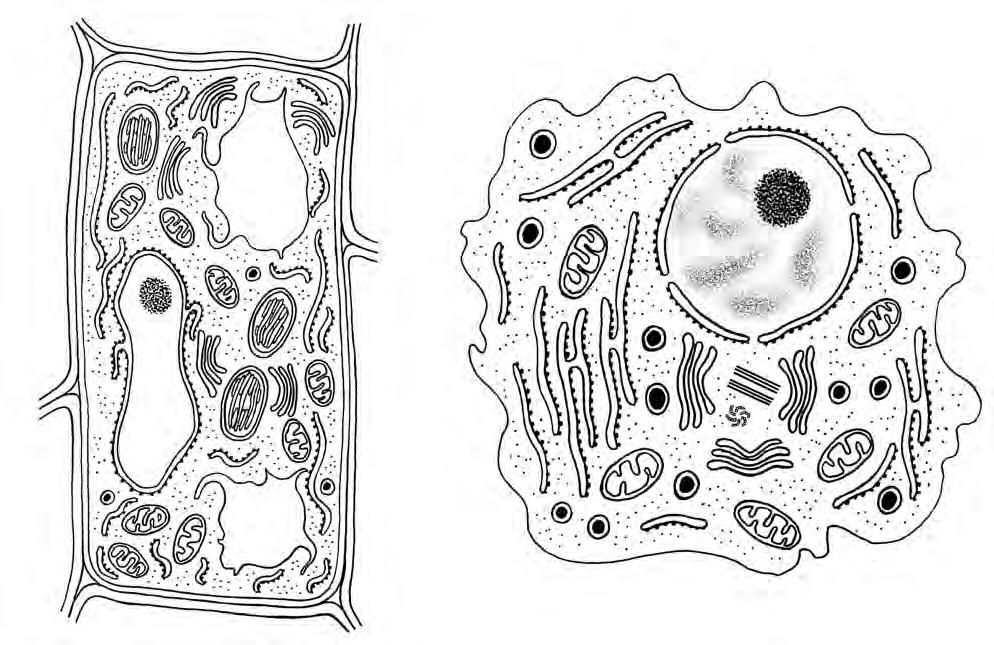
1. Comenta l’afirmació següent: «La cèl·lula eucariota representa un gran progrés evolutiu. Té una estructura molt més complexa que la dels bacteris i arqueobacteris.» La resposta ha d’incloure els mots següents: nucli, embolcall nuclear, unicel·lular, pluricel·lular, animals, vegetals, fongs, endosimbiosi.
2. Fixa’t en el dibuix a), el primer dels tres dibuixos de la columna dreta, que representa una cèl·lula eucariota.
a)Identifica cadascuna de les estructures i cadascun dels orgànuls assenyalats amb un nombre.
b)Digues quines funcions tenen.
3. El dibuix b), el segon dels dibuixos de la columna dreta d’aquesta pàgina, representa l’estructura interna d’un mitocondri. Escriu el nom de les parts assenyalades amb un nombre i respon a les preguntes següents:
a)Quina és la biomolècula que s’origina en els mitocondris?
b)Quina és la funció d’aquesta biomolècula?
c)Totes les cèl·lules eucariotes tenen mitocondris? Raona la resposta.
d)Explica el significat de la frase «els mitocondris tenen un patrimoni genètic propi».
e)Descriu el procés pel qual s’originen els mitocondris d’una cèl·lula.
4. El tercer dibuix, el dibuix c), representa un cloroplast. Escriu el nom de les parts assenyalades amb un nombre, explica quina funció té cada una i respon a les preguntes següents:
a)A quin tipus de cèl·lules es troben els cloroplastos?
b)Com es divideixen els cloroplastos?
c)Quin es creu que és l’origen dels cloroplastos?
d)Quines reaccions es produeixen a l’estroma?
e)Quina molècula es troba als tilacoides i als grana dels cloroplastos?
5. Fixa’t en el dibuix de la pàgina següent, que representa la membrana cel·lular, i escriu el nom de les parts assenyalades. Digues, també, quina és la funció de la bicapa lipídica de la membrana i la de les proteïnes.
6. Copia les paraules i els conceptes de la pàgina següent i relaciona els del primer grup amb els del segon grup.
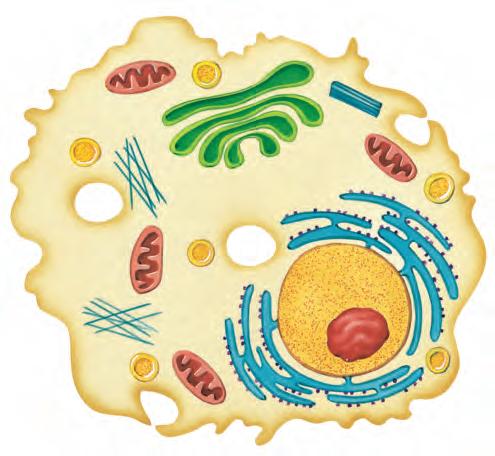
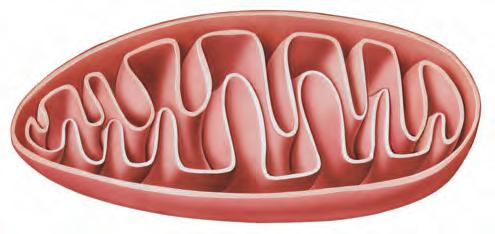
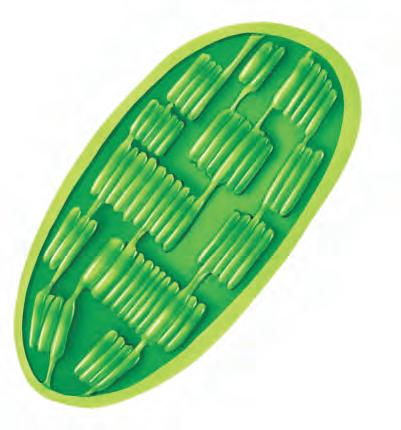
Primer grup: cloroplast, cromatina, ARNr, citosol, agent antioxidant, microtúbuls, flagel, dictiosomes, sense nucli, autofàgia, lisosoma, síntesi d’ATP, polisoma, leucoplast.
Segon grup: glicòlisi, moviment cel·lular, complex de Golgi, digestió intracel·lular, procariota, fotosíntesi, nucli cel·lular, mitocondri, peroxisoma, ribosoma, grup funcional de ribosomes, citoesquelet, magatzem de biomolècules, enzims hidrolítics.
7. Copia les frases següents i escriu al costat de cada una d’elles si és certa o falsa:
a)El centre cel·lular intervé en la divisió cel·lular (mitosi) de totes les cèl·lules eucariotes.
b)Les crestes dels mitocondris contenen carotens.
c)L’autofàgia és la digestió per part de les cèl·lules dels seus components.
d)Les reaccions que tenen lloc en els peroxisomes originen i degraden aigua oxigenada.
e)Els ribosomes es reprodueixen per escissió, de manera independent de la mitosi.
f)Els vacúols pulsàtils intervenen en la regulació del contingut d’aigua de la cèl·lula.
g)Els amiloplastos són plastidis en els quals s’emmagatzema glicogen.
h)Els ribosomes apareixen sempre adossats a la paret exterior del reticle endoplasmàtic.
i)Tot l’ADN de les cèl·lules eucariotes es troba dins el nucli.
j)La catalasa és l’enzim que es troba localitzat en els lisosomes.
k)Els organismes del regne de les moneres i del regne dels fongs són formats per cèl·lules procariotes.
l)La paret cel·lular de les cèl·lules vegetals és formada principalment per cel·lulosa.
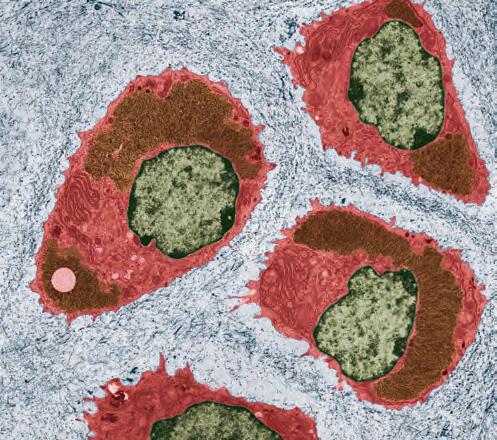
Cèl·lules cartilaginoses o condròcits vistes al microscopi electrònic de transmissió. En la fotografia (en fals color) el nucli apareix en verd i el citoplasma, en vermell. El citoplasma conté nombrosos grànuls de glicogen (en marró) (1600x).
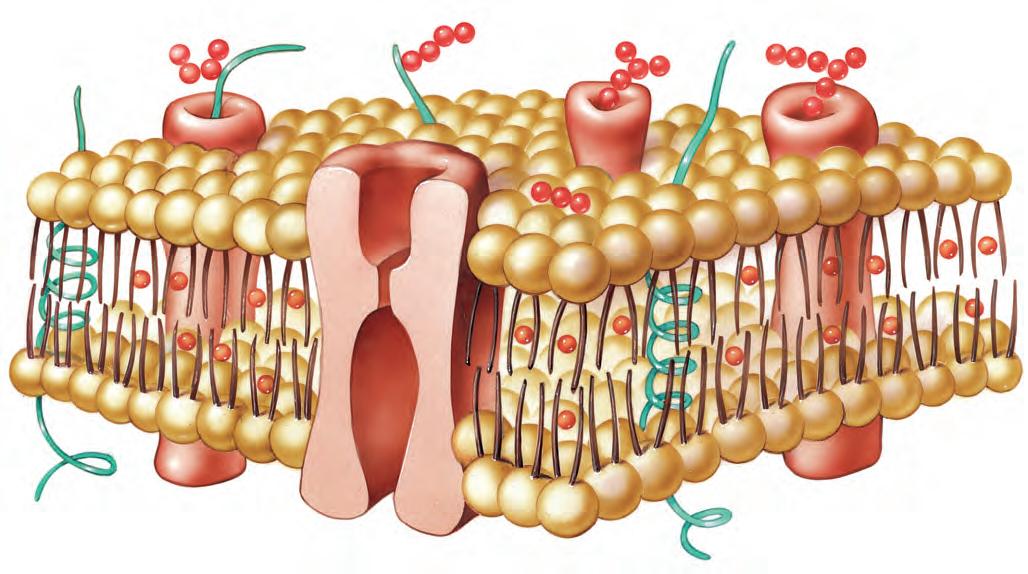
Objectiu
Observació al microscopi de diferents tipus de cèl·lules i de cultius de microorganismes, tant de preparacions ja fetes com de preparacions que es faran en el moment de l’observació.
Material
– Microscopi, portaobjectes, cobreobjectes i comptagotes.
– Micròtom i agulla histològica.
– Material de dissecció: agulles emmanegades, pinces de punta fina, bisturí, escuradents.
– Paper de filtre i colorants diversos: blau de metilè, orceïna, etc.
– Òrgans frescos de vegetals (arrel, tija, fulla), bulb de ceba, grans de pol·len.
– Cultius de microorganismes amb bacteris, protozous, algues, larves d’invertebrats, etc.
– Cultius purs de diferents microorganismes (es poden obtenir al Centre de Recursos Pedagògics del Departament d’Educació de la Generalitat de Catalunya).
– Preparacions ja fetes, freqüents als laboratoris escolars.
a)Observació de cèl·lules de l’epidermis d’un bulb de ceba
Talla un bulb de ceba i separa una de les fulles carnoses del seu interior, segons la il·lustració. Amb unes pinces, aparta’n uns trossets de l’epidermis. Col·loca un dels trossets damunt un portaobjetes i tira-hi unes quantes gotes d’aigua amb un colorant, per exemple, orceïna. Posahi al damunt el cobreobjectes i mira-ho al microscopi.
Observa les cèl·lules i fes un dibuix esquemàtic de la seva disposició en el teixit.
Consulta un diccionari i explica quin tipus d’òrgan és un bulb i quina és la seva funció. Què és l’epidermis? Quina funció desenvolupa en els vegetals?
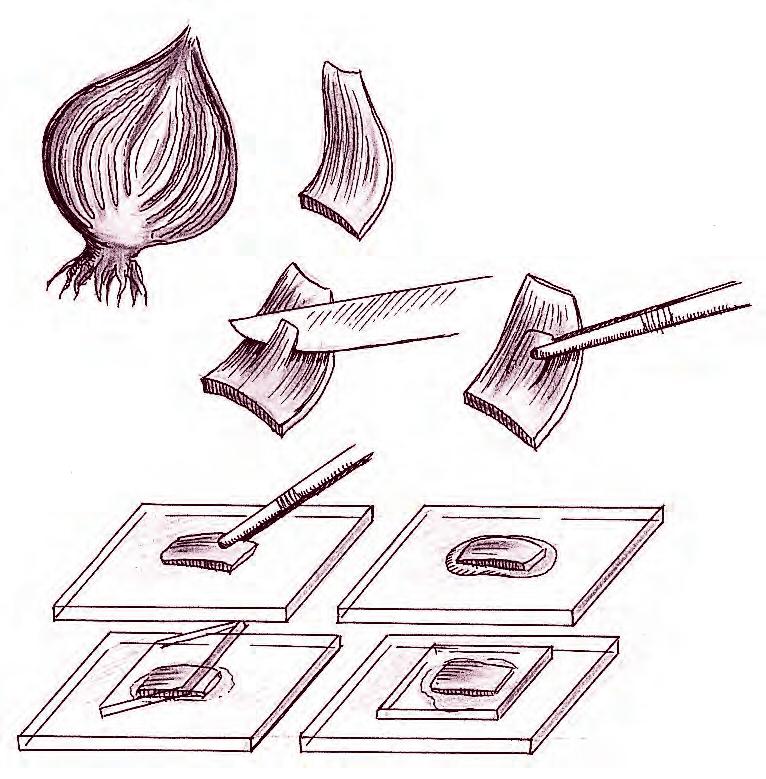
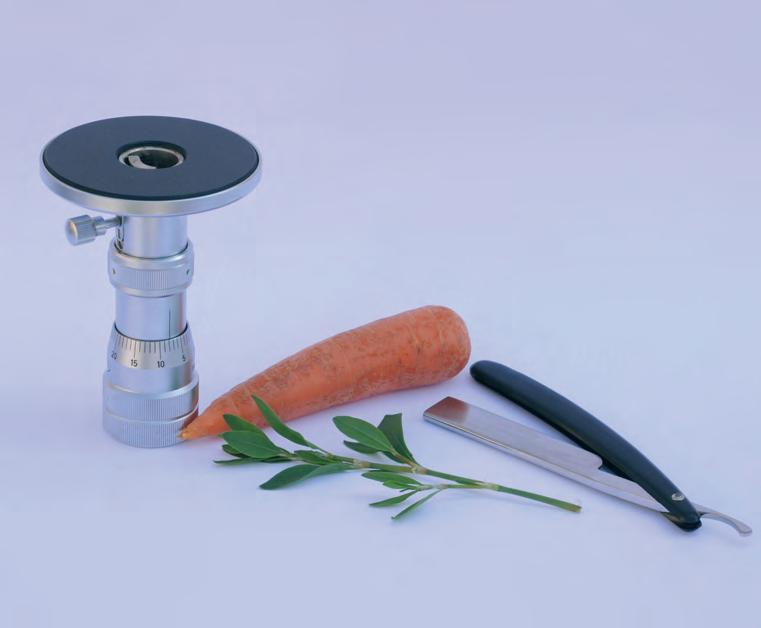
b) Observació de l’estructura interna de diferents òrgans vegetals
Per observar l’estructura interna de diferents òrgans vegetals (arrel, tija, pecíol, etc.), el més adequat és efectuar talls transversals prims d’òrgans vegetals tendres i després tenyir-los per comparar les diferents estructures.
El procediment de preparació de les mostres que es vol observar al microscopi inclou les etapes següents:
a)Obtenció d’un fragment d’un òrgan fresc (arrel, tija, etc.).
b)Inclusió d’aquest fragment entre dos blocs d’un material consistent, com ara pastanaga, patata, etc.
c)Col·locació, en l’espai central buit d’un micròtom de mà, del conjunt de la mostra i del material consistent. Fent servir el cargol de precisió i una navalla histològica o un bisturí s’obtenen talls molt prims.
d)Col·locació de cadascun dels talls obtinguts damunt un portaobjectes ben net i tinció dels talls per afavorir-ne l’observació.
Una bona tinció es pot aconseguir deixant la mostra amb hematoxilina durant uns deu minuts. A continuació, es renta la mostra amb aigua destil·lada i s’hi afegeix un nou colorant, el verd de iode, que es deixa durant uns tres minuts. Es renta la mostra i es col·loca el cobreobjectes.
Disposa de grans de pol·len, que aconseguiràs fàcilment a partir de flors madures. A l’hivern, quan té lloc la pol·linització dels pins, pots prendre el pol·len d’aquests arbres, ja que es conserva amb facilitat.
Per fer les observacions, espolsa els grans de pol·len damunt un portaobjectes net i col·loca-hi el cobreobjectes al damunt.
Els grans de pol·len tenen una mida i una forma característiques de cada espècie de planta fanerògama. Dibuixa els grans de pol·len que has observat.
Fent les consultes oportunes, defineix el terme pol·len i explica quina funció té en la reproducció de les plantes fanerògames. La ciència que estudia la morfologia dels grans de pol·len s’anomena palinologia.
d)Observació de cèl·lules epitelials de la mucosa bucal humana
Amb un escuradents o un objecte semblant, rasca dues vegades la mucosa de les parets interiors de la boca. Havent descartat el producte de la primera rascada, posa ben estès el de la segona fricció sobre un portaobjectes net.
Afegeix-hi unes quantes gotes d’un colorant (per exemple, orceïna acètica al 2%), posa el cobreobjectes, observa la preparació al microscopi i fes un dibuix esquemàtic i una breu descripció de les cèl·lules que s’hi veuen.
Consultant un diccionari, defineix els termes teixit epitelial i mucosa
Els llevats són fongs unicel·lulars, del grup dels ascomicets, que es reprodueixen per escissió o gemmació. Són els causants de nombroses fermentacions, algunes de les quals són la base per a l’obtenció de productes de gran consum, com ara el pa, el vi, la cervesa, el cava, etc. Els llevats es poden adquirir a les fleques i a botigues especialitzades en productes alimentaris.
En un portaobjectes, tira-hi una gota d’aigua i amb una agulla emmanegada toca la mostra de llevat i després la gota d’aigua. Col·loca-hi el cobreobjectes i observa els llevats al microscopi. Fes una breu descripció i un dibuix esquemàtic de les cèl·lules del llevat.
Fent les consultes oportunes, defineix els termes fong, gemmació i fermentació
En aquesta experiència de laboratori, partirem de l’estudi al microscopi de l’aigua d’una bassa per poder fer un repàs del món dels protistos o organismes unicel·lulars.
L’aigua verdosa de les basses i els safareigs conté algues i altres organismes microscòpics.
Utilitzarem «aigua verda» d’algun bassiol o safareig. Rascarem, lleugerament, el «verdet» fixat a les parets, ja que moltes vegades a més de les algues hi ha també molts organismes adherits.
De fet, dins d’aquestes aigües, hi ha tota una comunitat microscòpica amb productors, consumidors i desintegradors. En el laboratori repartirem l’aigua en diferents brocals. Podem afegir-hi pa (per augmentar la matèria orgànica present), il·luminar-ho (per afavorir o alentir la fotosíntesi) o escalfar-ho (per accelerar els processos vitals).
Es tracta, doncs, d’anar observant l’evolució d’aquestes aigües i anotar o dibuixar els organismes observats i la seva freqüència. Apuntarem també l’augment del microscopi utilitzat.
El procediment d’observació serà sempre el mateix. Agafa amb un comptagotes una o dues gotetes d’aigua i posa-les sobre un portaobjectes. Amb cura, i amb l’ajuda d’una agulla emmanegada, deixa-hi caure el cobreobjectes suaument perquè no quedin bombolles d’aire.
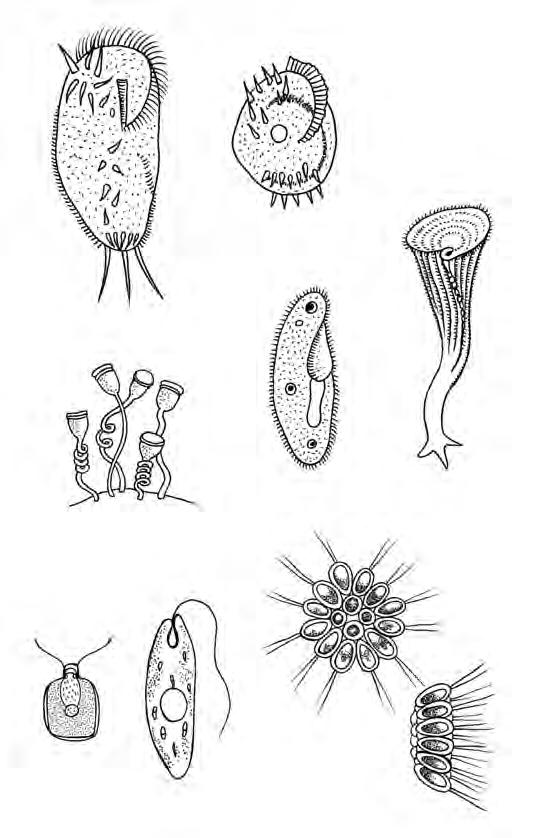
Els colorants (blau de metilè o roig neutre) et serviran per augmentar el contrast del nucli i de les estructures cel·lulars. En forta dilució, aquests colorants són compatibles amb la vida dels organismes; però si n’augmentes la concentració fins a l’1%, per exemple, provocaràs la mort dels organismes. Així que hi posarem, en cada cas, tan sols una o dues gotetes de colorant.
Per observar els bacteris (organismes desintegradors) cal utilitzar grans augments.
Els organismes unicel·lulars són variadíssims i és molt difícil identificar-los ràpidament. Ens guiarem per alguns caràcters, però, per saber la seva biologia. Si tenen cloroplastos voldrà dir que són productors i, si neden activament, seran, probablement, depredadors d’altres organismes més menuts. Si s’acumulen en grans quantitats entorn de restes o detritus en descomposició vol dir que són desintegradors.
De tota manera, les il·lustracions ens presenten alguns organismes dels més freqüents. Els ciliats són heteròtrofs i neden ràpidament per mitjà dels seus nombrosos cilis. Els flagel·lats són verds perquè tenen clorofil·la i neden activament, però lentament, amb un o dos flagels.
Objectiu
Observació d’alguns processos cel·lulars relacionats amb les membranes.
Material
– Paper i bossa de paper de cel·lofana.
– Sucre.
– Tub de vidre.
– Recipient transparent de vidre.
– Aigua destil·lada.
– Una patata.
a) El funcionament de les membranes i l’osmosi
Les membranes cel·lulars són semipermeables: deixen passar només certes substàncies. Per comprovar-ho, ens serà fàcil de fer un petit muntatge amb paper de cel·lofana, que es comporta com una membrana semipermeable.
Posa aigua en un got i aboca-hi tres o quatre cullerades de sucre. Vessa aquest líquid a l’interior d’una bossa feta amb paper de cel·lofana, introdueix-hi un tub de vidre en posició vertical i col·loca-hi el tub sense que el líquid pugi gaire amunt. Després senyala amb un retolador el nivell del líquid i, a continuació, submergeix tot el dispositiu en un got que contingui aigua sense sucre i observa cada 20 minuts el nivell del líquid en el tub.
a) Què passa amb el nivell del líquid?
b) Quina n’és l’explicació?
c) Què és una membrana semipermeable?
Agafa una bossa de cel·lofana, omple-la gairebé del tot amb aigua força ensucrada i posa-la dins d’un recipient amb aigua destil·lada, tal com il·lustra el dibuix (a) de la figura que hi ha al costat. Tres quarts o una hora més tard, la bossa tindrà l’aspecte del dibuix (b).
a)Per què ha canviat de forma, la bossa de cel·lofana?
b)Què hauria passat si l’haguéssim submergit en una solució ensucrada més concentrada que la de l’interior?
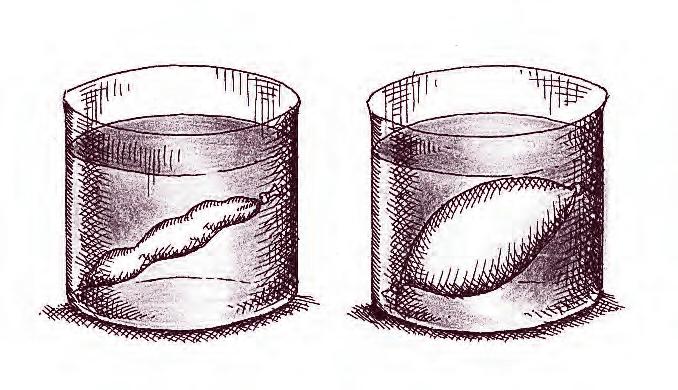
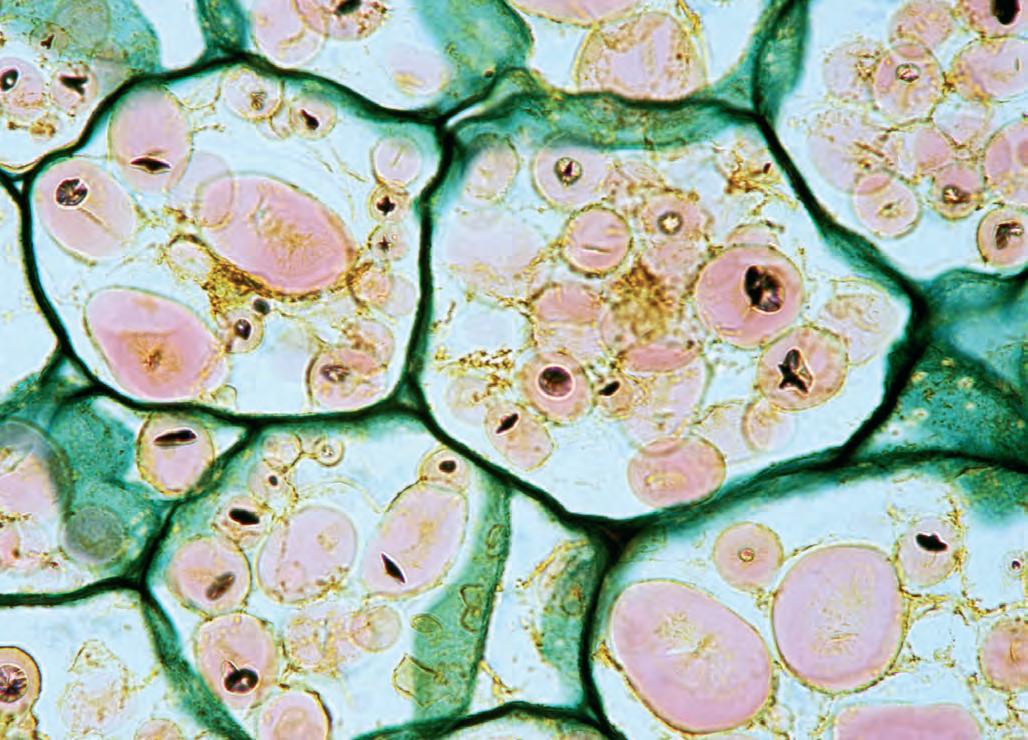
c)Què hauria passat si l’haguéssim submergit en una solució ensucrada igual de concentrada que la de l’interior?
d)Explica si això té cap paral·lelisme amb el comportament de la membrana plasmàtica.
Pela una patata crua, talla’n dues tires iguals (com per fer patates fregides) de 5cm de llarg, i col·loca-les en dos recipients diferents: l’un ple d’aigua destil·lada i l’altre, d’una solució concentrada de sucre.
Al cap de 30 minuts aproximadament, observaràs que una tira de patata s’ha allargat i l’altra s’ha encongit.
A partir dels coneixements adquirits en aquesta unitat al llarg de les activitats proposades, contesta a les preguntes següents:
a)Què pot haver passat amb les cèl·lules de la patata?
b)Quina és la tira de patata que s’ha allargat? Per què s’ha allargat?
c)Quina és la tira de patata que s’ha encongit? Què ho explica?
d)Repeteix l’experiment amb dues tires de patata bullida. Les tires de patata, s’allarguen o s’encongeixen? Per què?
e)Si volguessis posar una tira de patata crua en una solució sense que s’estiri o s’encongeixi, com hauria de ser la dissolució?
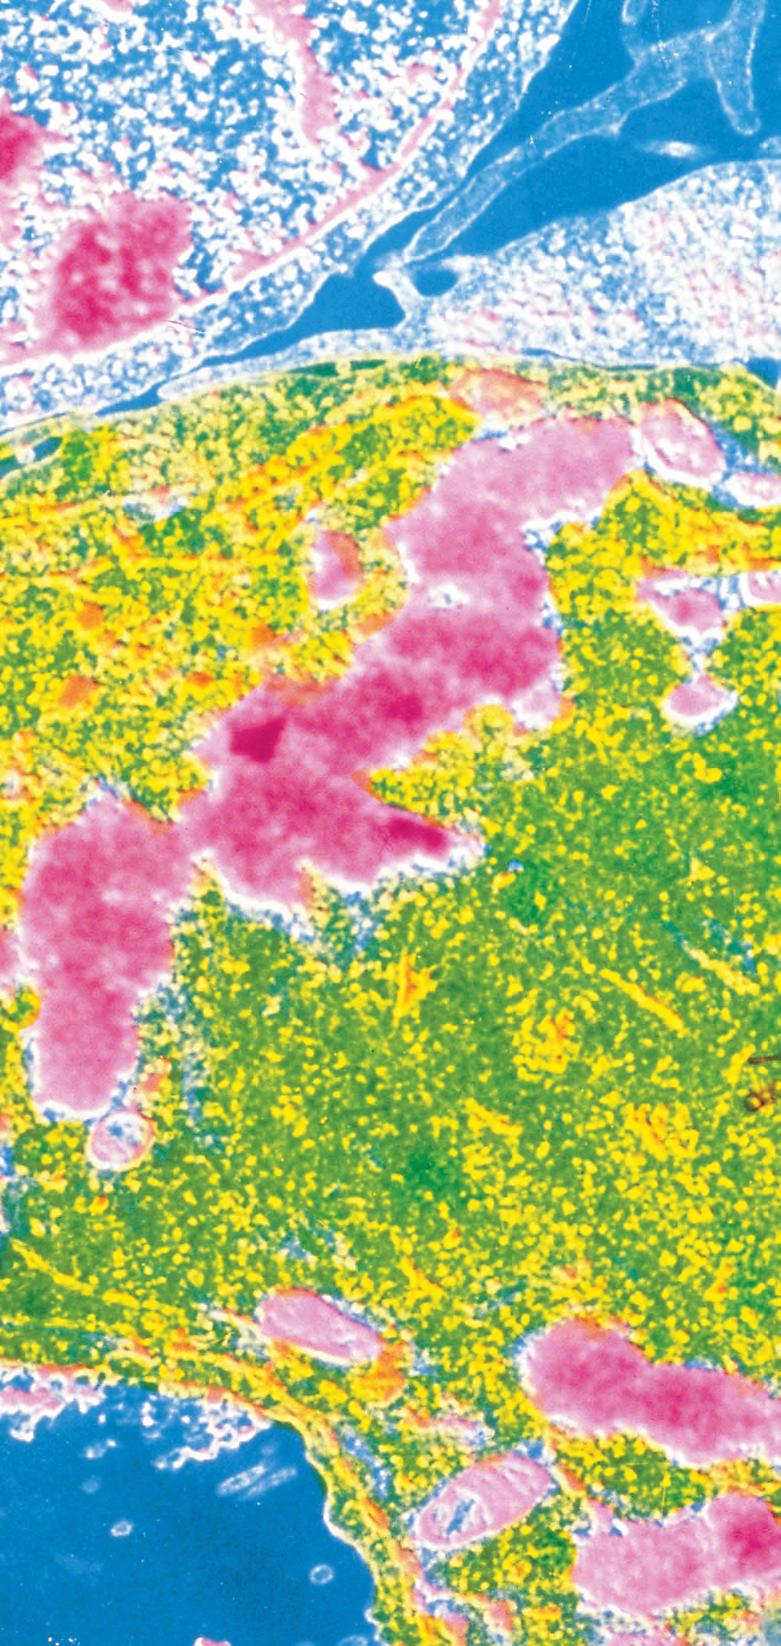
Esquema
1.El nucli cel·lular
2.El cicle cel·lular
3.La divisió cel·lular. La mitosi
4.La meiosi
5.El càncer
Microfotografia (en fals color) feta al microscopi electrònic de transmissió d’una cèl·lula humana en divisió cel·lular mitòtica (anafase) en què destaquen (en color rosa) els cromosomes (5000x).
La gran quantitat de cèl·lules que formen el cos humà (segons alguns càlculs, n’hi ha uns 30 bilions) viuen en una clara interdependència, en la qual les unes regulen el creixement i la proliferació de les altres.
En els organismes pluricel·lulars, la divisíó cel·lular, també anomenada mitosi, permet passar d’un estadi unicel·lular, la cèl·lula ou o zigot, a un de pluricel·lular. Les cèl·lules canceroses no respecten els controls normals de creixement i proliferació, i segueixen les seves instruccions de reproducció. Un càncer és un grup de cèl·lules de forma anormal que es reprodueixen de manera incontrolada. Algunes poden sortir del lloc on s’han format, entrar al sistema circulatori i envair altres òrgans.
La fibra cromosòmica conté xifrat en una espècie de codi en miniatura tot el futur de l’organisme, el seu desenvolupament i el seu funcionament. Així mateix, les estructures cromosòmiques posseeixen també els mitjans per posar en pràctica aquest programa. Són al mateix temps la llei i el poder executiu, el pla de l’arquitecte i la tècnica del constructor.
El nucli és l’orgànul que conté gairebé tot l’ADN de la cèl·lula, és a dir, és el portador de la informació genètica i el director de l’activitat cel·lular. Generalment, ocupa una posició central en la cèl·lula i, tret dels vacúols d’algunes cèl·lules vegetals, és l’orgànul més voluminós.
En les cèl·lules en interfase (és a dir, que no es divideixen), el nucli és format per l’embolcall nuclear, el nucleoplasma, la cromatina i el nuclèol.
L’embolcall nuclear separa el nucli del citoplasma i està format per una doble membrana unitària, travessada per nombrosos porus que regulen els intercanvis materials amb el citoplasma. Cap a l’interior del nucli penetren els nucleòtids, per a la síntesi dels àcids nucleics, els enzims (ribonucleasa, transcriptasa…), les molècules energètiques, etc. Del nucli surten diferents tipus de molècules d’ARN.
El medi intern del nucli, o nucleoplasma, és una dissolució col·loïdal formada per proteïnes, glúcids, lípids, nucleòtids, nucleòsids i ions inorgànics. Conté el nuclèol i la cromatina.
El nuclèol, del qual hi ha sovint un o dos, és un corpuscle esferoïdal d’uns 2 µm de diàmetre format per ADN, ARN i enzims. És el lloc on se sintetitza l’ARN ribosòmic, el qual es fixa amb les proteïnes ribosòmiques per formar les subunitats dels ribosomes.
La cromatina és la matèria del nucli que conté la major part de l’ADN de les cèl·lules eucariotes. El seu nom fa referència al fet que es tenyeix fàcilment amb colorants bàsics. Químicament, la cromatina està formada per proteïnes, del grup de les histones, i per ADN, amb quantitats més baixes d’ARN, fosfolípids i ions calci. Al llarg de la major part del cicle cel·lular, entre dues divisions cel·lulars o mitosis, la cromatina apareix organitzada en fibres de 30 nm de gruix, i disperses per tot el nucli. Cada fibra presenta un eix d’histones al voltant del qual s’enrotlla l’ADN.
Durant la interfase, la cromatina es duplica i en iniciar-se la mitosi les fibres es condensen i originen els cromosomes.
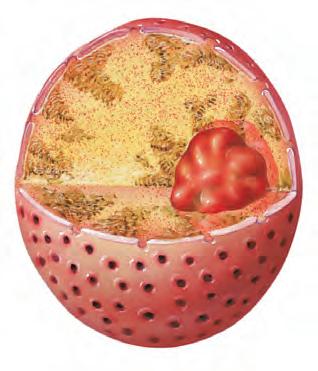
Els cromosomes són filaments grossos que es comencen a fer visibles a l’inici de la divisió cel·lular, per condensació de les fibres de cromatina. De fet, els cromosomes i les fibres de cromatina són dos estadis diferents del mateix material biològic.
A causa del seu contingut en ADN, els cromosomes són els corpúsculs portadors de l’herència biològica.
En una determinada etapa de la divisió cel·lular (metafase), cada cromosoma apareix dividit longitudinalment en dues unitats simètriques, les cromàtides, unides pel centròmer, que el divideix en dos braços. L’extrem de cada braç s’anomena telòmer
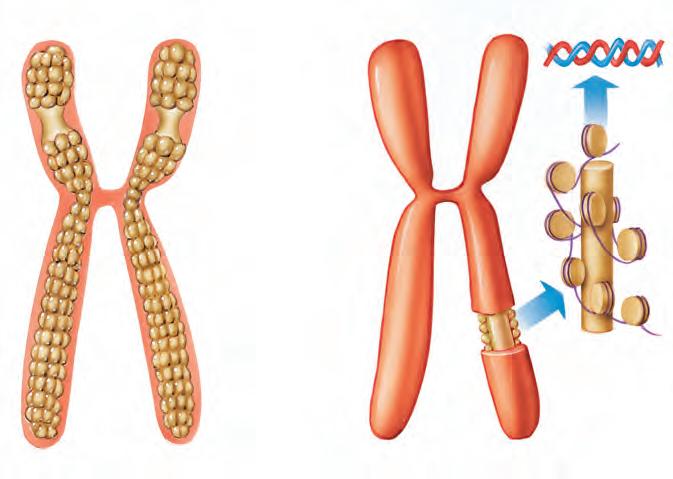
Esquema d’un cromosoma metafàsic.
Segons la posició del centròmer, els cromosomes poden ser metacèntrics (1), amb el centròmer en posició central i els dos braços iguals; submetacèntrics (2), amb el centròmer no central i els dos braços lleugerament desiguals; acrocèntrics (3), amb el centròmer clarament desplaçat cap a un dels extrems i els dos braços de mida molt diferent, i telocèntrics (4), amb el centròmer prop del telòmer.
Llei de la constància numèrica dels cromosomes. Totes les cèl·lules d’un organisme i de tots els individus de la mateixa espècie tenen el mateix nombre de cromosomes, la qual cosa està relacionada amb el fet que els individus de cada espècie posseeixen una quantitat fixa de cromatina i, per tant, una mateixa informació genètica. Cal remarcar que el nombre de cromosomes de les diferents espècies no té cap relació ni amb les mides ni amb el seu grau evolutiu. Cariotip. És el conjunt de les característiques dels cromosomes de les cèl·lules dels individus d’una espècie (nombre, forma, mida, etcètera). El cariotip humà està format per 46 cromosomes. Cromosomes homòlegs. En el cariotip de la major part d’espècies, cada cromosoma està representat, en realitat, per dos exemplars iguals i equivalents, anomenats cromosomes homòlegs, l’un procedent de la mare i l’altre, del pare. El cariotip d’una espècie es pot indicar també pel nombre de parells de cromosomes homòlegs (23 parells en el cas de l’ésser humà).
Cèl·lules diploides i cèl·lules haploides. La dotació cromosòmica d’una espècie s’expressa per la fórmula 2n, en la qual n és el nombre de parells de cromosomes homòlegs. Les cèl·lules diploides són les que tenen 2n cromosomes. En els organismes que es reprodueixen sexualment, les cèl·lules reproductores o gàmetes tenen un únic representant de cada parell de cromosomes homòlegs; tenen, per tant, tots els cromosomes diferents: presenten n cromosomes i es diu que són cèl·lules haploides.
Heterocromosomes o cromosomes sexuals. En molts organismes superiors, un dels parells de cromosomes homòlegs es diferencia dels altres pel fet que en els individus d’un dels sexes no són iguals. S’anomenen heterocromosomes o cromosomes sexuals, per diferenciar-los dels altres parells, o autosomes. El sexe que presenta els dos heterocromosomes iguals, que normalment és el femení, s’anomena homogamètic. Aquests cromosomes es designen amb la lletra X, i l’altre, diferent, amb la lletra Y. El parell de cromosomes sexuals de les femelles d’aquestes espècies serà XX i el dels mascles, XY.
Nombre de cromosomes d’algunes espècies animals.
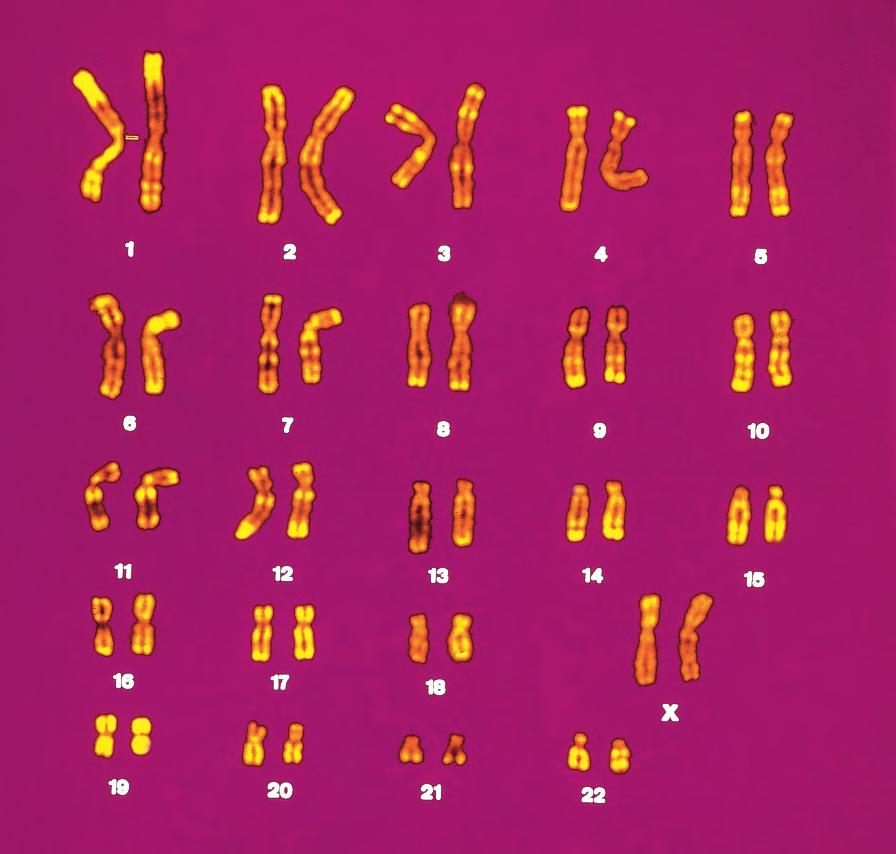
a) Cariotip humà ( $). b)Cromosoma gegant de drosòfila (400x).
3.1. Quina és la diferència entre el nucleoplasma i la cromatina? Indica algun sinònim del primer terme.
3.2. Com s’anomena la separació entre el citosol i el nucleoplasma? Quina és la composició d’aquesta estructura? Explica’n les relacions amb els altres orgànuls del citoplasma.
3.3. Enumera els principals components de la cromatina. Aquesta substància experimenta canvis importants al llarg del cicle cel·lular. En quines dues formes es presenta aquesta substància al llarg del cicle?
3.4. Defineix cromosoma, centròmer i telòmer. Indica els noms de quatre tipus de cromosomes segons la posició del centròmer i fes-ne un dibuix.
3.5. Quina fórmula es fa servir per indicar el nombre de cromosomes d’una espècie? Digues quin és el nombre de cromosomes en el cariotip humà.
3.6. Quins noms reben els cromosomes sexuals en la major part dels animals superiors? Digues com s’anomenen els cromosomes sexuals del mascle i de la femella en els mamífers.
3.7. La il·lustració de la dreta representa el nucli cel·lular. Escriu el nom de les parts assenyalades amb un nombre i indica’n la funció. Escriu també quins monòmers penetren en el nucli pels porus de l’embolcall nuclear, per fer possible la síntesi dels àcids nucleics, i quines molècules d’aquests àcids nucleics surten del nucli per participar en la síntesi de les proteïnes.
3.8. Defineix els termes homogamètic i heterogamètic
3.9. Defineix la funció del nuclèol i descriu-la.
3.10. Amb quina estructura del citoplasma està relacionat l’embolcall nuclear? Quines substàncies passen a través seu?
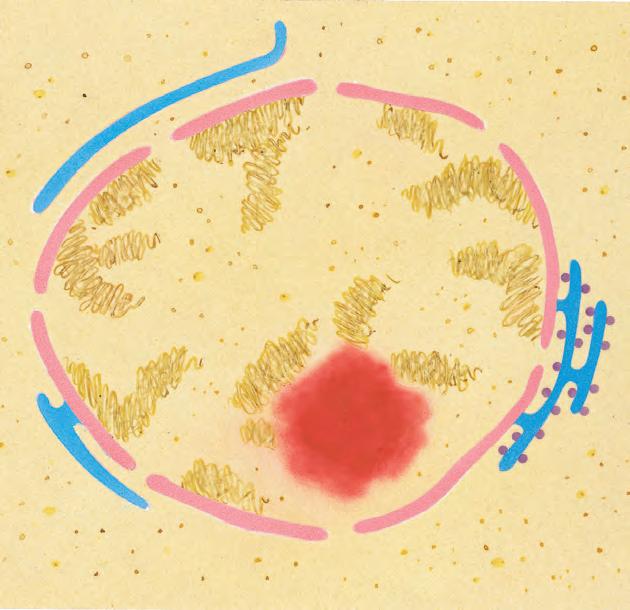
3.11. Indica el nombre de cromosomes de l’ésser humà, del ximpanzé, de la vaca, de la drosòfila i del gos. Digues també per què és important la constància numèrica dels cromosomes?
3.12. En quina estructura del nucli se sintetitza la major part de l’ARN de la cèl·lula? Quin és el destí d’aquestes molècules?
3.13. Quina és la diferència entre els autosomes i els heterocromosomes? Quina és la procedència de cadascun dels cromosomes de cada parell?
3.14. Explica les diferències entre les cèl·lules diploides i les haploides. Quina és la funció d’aquestes últimes? Com s’anomenen en la majoria dels animals superiors que es reprodueixen sexualment?
3.15. Digues quants parells d’autosomes conté el cariotip humà.
3.16. Explica el significat de la frase següent: «La meiosi és a la base de la regulació del sexe dels individus.»
3.17. Observa la il·lustració que hi ha al costat i digues quin nom reben els cromosomes amb aquesta morfologia.
G1: Gran activitat metabòlica de la cèl·lula, amb una síntesi intensa de proteïnes, un augment de mida i una preparació per duplicar l’ADN. Al final d’aquesta fase, en el punt de restricció (R), el nivell de certes proteïnes determina si el cicle cel·lular ha d’aturar-se o ha de continuar.
S: Duplicació de l’ADN del nucli.
G2: Comencen a individualitzar-se els cromosomes i tota la cèl·lula es prepara per dividir-se i originar dues cèl·lules. M: Mitosi.
El cicle cel·lular és el període de temps que transcorre des que una cèl·lula es forma, per divisió d’una cèl·lula progenitora, fins que ella mateixa es divideix.
El cicle cel·lular inclou quatre fases o etapes, anomenades G1, S, G2 i M. El conjunt de les tres primeres constitueix la interfase, mentre que la fase M correspon a la mitosi
Per regular aquesta successió de fenòmens, les cèl·lules reben un conjunt de senyals, en forma de molècules de proteïnes, la major part dels quals procedeixen de cèl·lules veïnes: s’anomena rellotge del cicle cel·lular. Uns d’aquests senyals són estimuladors del creixement cel·lular i «posen en marxa» la divisió de la cèl·lula, mentre que d’altres en són inhibidors.
Aquest rellotge o sistema de control del cicle cel·lular opera d’una manera anàloga al sistema de control d’una rentadora. La rentadora funciona seguint una sèrie de passos:entrada d’aigua, entrada de detergent, rentatge, esbandida i centrifugat. Un sistema de control, amb sensors del nivell d’aigua, fa que cada etapa comenci quan ha acabat l’anterior.
La cèl·lula funciona de manera semblant:les etapes del cicle se succeeixen segons un ordre determinat. Les proteïnes que regulen el cicle cel·lular –ciclines i proteïnes quinasa– s’activen, per fosforilació, només en el moment en què ha de començar l’etapa que controlen.
Quan el rellotge del cicle cel·lular funciona correctament, la cèl·lula creix i es divideix de manera adequada. Algunes vegades el rellotge es descontrola i les cèl·lules no dominen ni el seu creixement ni la seva divisió.
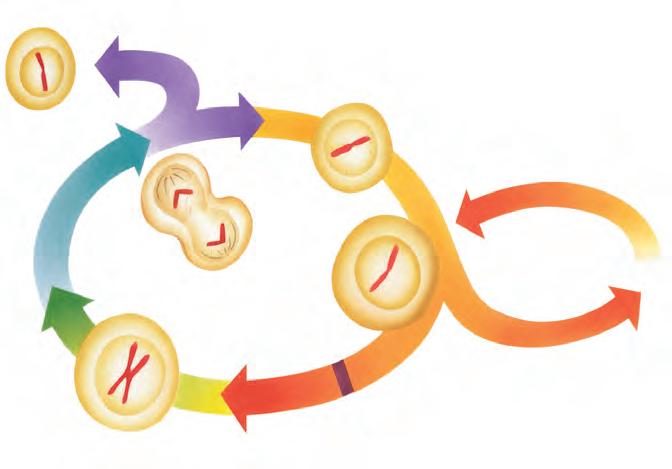
Començament del cicle
Punt de restricció: la cèl·lula opta per seguir o no el cicle cel·lular
La cèl·lula es deté
La divisió cel·lular o mitosi és un procés fonamental en la vida dels organismes. Mitjançant aquest procés, una cèl·lula dóna lloc a dues cèl·lules filles, cadascuna de les quals té la mateixa dotació cromosòmica i les mateixes parts (membranes, orgànuls, etc.) que la cèl·lula inicial.
La mitosi és una part del cicle cel·lular que s’inicia quan la cèl·lula rep uns senyals químics en forma de proteïnes (ciclines i quinases) que modifiquen altres components de la cèl·lula.
L’any 1858 el biòleg Rudolf Virchow va formular el seu axioma: «tota cèl·lula s’origina a partir d’una altra de preexistent», que condueix al concepte de multiplicació cel·lular per divisió.
Inici de la duplicació
Nucleofilament desenrotllat
Interfase Mitosi
Descondensació del cromosoma
Telofase
Separació de les dues cromàtides
Cromosoma molt condensat
Nucleofilament duplicat
Centròmer
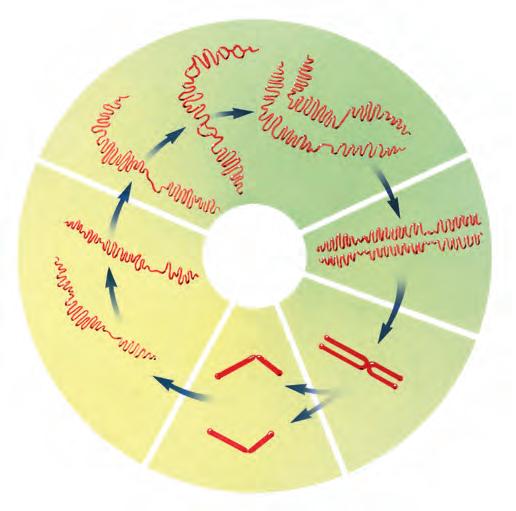
Individualització del cromosoma (format per dues cromàtides)
Cicle cel·lular exemplificat amb els canvis que experimenta un cromosoma.
En els organismes unicel·lulars, la mitosi augmenta el nombre d’individus i és sinònim de reproducció.
En els organismes pluricel·lulars, el ritme i la capacitat de divisió de les cèl·lules són diversos. En el cas de l’ésser humà, per exemple, la cèl·lula ou o zigot es divideix ràpidament i en unes 80 hores es converteix en una bola formada per nombroses cèl·lules (mòrula), per passar després als estadis embrionari i fetal. Durant el període embrionari, les cèl·lules es divideixen activament, es diferencien les unes de les altres i adquireixen formes diverses i funcions específiques. Durant el desenvolupament, algunes cèl·lules veuen afeblida la seva capacitat de dividir-se, com ara les neurones o les cèl·lules dels músculs esquelè-
Membrana plasmàtica Paret cel·lular
Citoplasma
Embolcall nuclear
Cromosoma Nuclèol Nucli
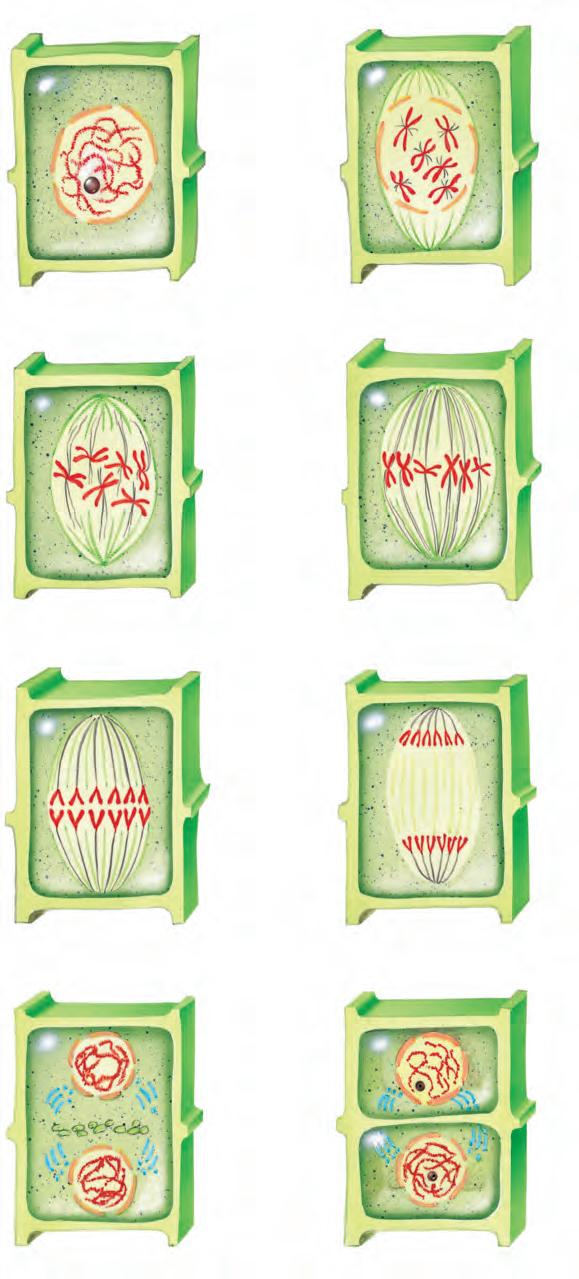
Embolcall nuclear Cromosoma
Fibres cromosòmiques
Fibres polars
Centròmer
Cromàtides
Fibres polars
Fibres cromosòmiques
Cromosomes disposats en el pla equatorial
Fus acromàtic
Separació de les dues cromàtides
Ascensió polar dels cromosomes fills
Escurçament de les fibres cromosòmiques
Embolcall nuclear
Complex de Golgi
Fragmoplast Cromosomes apilotats
Etapes de la mitosi en les cèl·lules vegetals.
Dues cèl·lules filles
tics. D’altres es divideixen durant tota la vida de l’organisme, per exemple, les cèl·lules que originen els espermatozoides o les que produeixen les cèl·lules sanguínies. Finalment, algunes cèl·lules solament es divideixen per reemplaçar les cèl·lules mortes o per cicatritzar ferides, com passa amb les cèl·lules de l’epidermis o dels epitelis digestius.
En certs òrgans de les plantes, com ara els extrems de la tija i de l’arrel, la capacitat de divisió es manté durant tota la vida del vegetal.
La mitosi és un procés continu, però per facilitarne la comprensió i l’estudi, el dividim en quatre fases, anomenades profase, metafase, anafase i telofase.
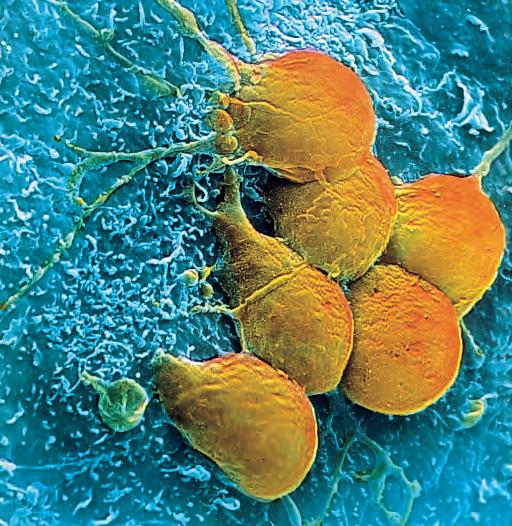
Tal com acabem de veure en tractar del cicle cel·lular, abans no comenci la mitosi s’ha produït la duplicació de l’ADN, de manera que, ara, els cromosomes estan formats per dues cromàtides.
La profase es caracteritza per la progressiva condensació de les fibres de cromatina amb individualització dels cromosomes, cadascun dels quals apareix format per dos filaments, les cromàtides, units pel centròmer. Simultàniament, comença a desfer-se la membrana nuclear, desapareix el nuclèol i es forma el fus acromàtic, constituït per fibres i túbuls de proteïna. En les cèl·lules animals, el centrosoma es divideix i els centríols se situen en els pols oposats de la cèl·lula.
En la metafase, ja sense embolcall nuclear, els cromosomes es desplacen cap al pla equatorial de la cèl·lula, i resten immobilitzats i ordenats per les fibres del fus acromàtic. Es forma així la placa equatorial o metafàsica.
Durant l’anafase, les dues cromàtides que formen cada cromosoma se separen, a causa de la divisió del centròmer, i es transformen en dos cromosomes autònoms idèntics. A continuació, i seguint les fibres del fus acromàtic, cada cromosoma nou es desplaça cap a un dels pols de la cèl·lula i, al final de l’anafase, cada un té una dotació cromosòmica completa i idèntica a la de la cèl·lula inicial (figures anomenades estrelles filles).
Durant la telofase, els esdeveniments segueixen un procés invers al de la profase: a cada pol de la cèl·lula els cromosomes es descondensen fins a transformar-se una altra vegada en fibres de cromatina; reapareix el nuclèol i es reconstrueix l’embolcall nuclear. A cada pol de la cèl·lula, s’hi ha reconstruït un nucli fill.
En el citoplasma s’esdevenen, simultàniament (pot, fins i tot, haverse avançat al final de l’anafase), la regressió del fus acromàtic, la divisió del citoplasma i la reorganització de la membrana plasmàtica.
(en fals color) del teixit nerviós, obtinguda per mitjà d’un microscopi electrònic.
Per mitjà de la mitosi una cèl·lula origina dues cèl·lules filles, cada una amb la mateixa dotació cromosòmica que la cèl·lula inicial.
En els organismes amb reproducció sexual hi ha un altre tipus de divisió cel·lular, la meiosi, que inclou dues divisions cel·lulars i origina quatre cèl·lules, cada una amb la meitat dels cromosomes de la cèl·lula inicial.
En els organismes amb reproducció sexual, hi ha un altre tipus de divisió cel·lular, anomenat meiosi, que inclou dues divisions cel·lulars successives i que dóna lloc, a partir d’una cèl·lula diploide, a la formació de quatre cèl·lules filles haploides. Aquest fet s’esdevé perquè durant les dues divisions meiòtiques només hi ha una duplicació i una divisió longitudinal dels cromosomes. La meiosi és, doncs, una divisió reduccional perquè els nuclis de les cèl·lules resultants tenen només la meitat dels cromosomes de la cèl·lula inicial.
La primera divisió meiòtica (meiosi I) s’inicia amb una profase molt llarga i complexa, clarament diferent de la profase d’una mitosi normal, que se subdivideix en cinc subfases, anomenades leptotè, zigotè, paquitè, diplotè i diacinesi.
En aquesta profase, els cromosomes homòlegs s’aparellen l’un al costat de l’altre (sinapsi) i formen els bivalents, parells de cromosomes homòlegs amb quatre cromàtides cada parell. Abans de separar-se, els bivalents mantenen una o diverses zones de contacte, els quiasmes, a través dels quals es produeix l’entrecreuament o intercanvi de material genètic, de tal manera que hi ha fragments de cromàtides que passen d’un cromosoma homòleg a l’altre.
Al final d’aquesta profase, els cromosomes homòlegs se separen definitivament (disjunció), es dissol el nuclèol i comença la desorganització de l’embolcall nuclear.
Observació al microscopi òptic de cèl·lules durant les subfases zigotè i paquitè de la profase de la primera divisió meiòtica (meiosi I).
Les fases següents de la primera divisió meiòtica són semblants a les d’una mitosi normal, però se separen cromosomes homòlegs en lloc de cromàtides germanes. El resultat de la meiosi I és la formació de dues cèl·lules filles amb n cromosomes, casdascun amb dues cromàtides. A causa de l’entrecreuament, aquests cromosomes seran diferents dels de la cèl·lula inicial.
La segona divisió meiòtica (meiosi II) és semblant a una mitosi normal, sense duplicació prèvia de l’ADN.
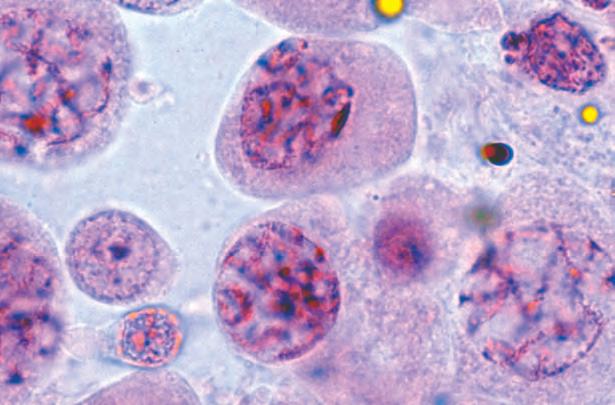
El resultat final de la meiosi és la formació de quatre cèl·lules haploides amb n cromosomes a partir d’una cèl·lula diploide.
En els animals, la meiosi té lloc en el transcurs de la formació dels gàmetes, és a dir, durant el procés de formació dels espermatozoides en els mascles (espermatogènesi) i durant el procés de formació dels òvuls en les femelles (ovogènesi). En les plantes superiors, els productes de la meiosi són la micròspora, en el gra de pol·len, i la megàspora, a l’interior del sac embrionari.
PROFASE
Bivalents
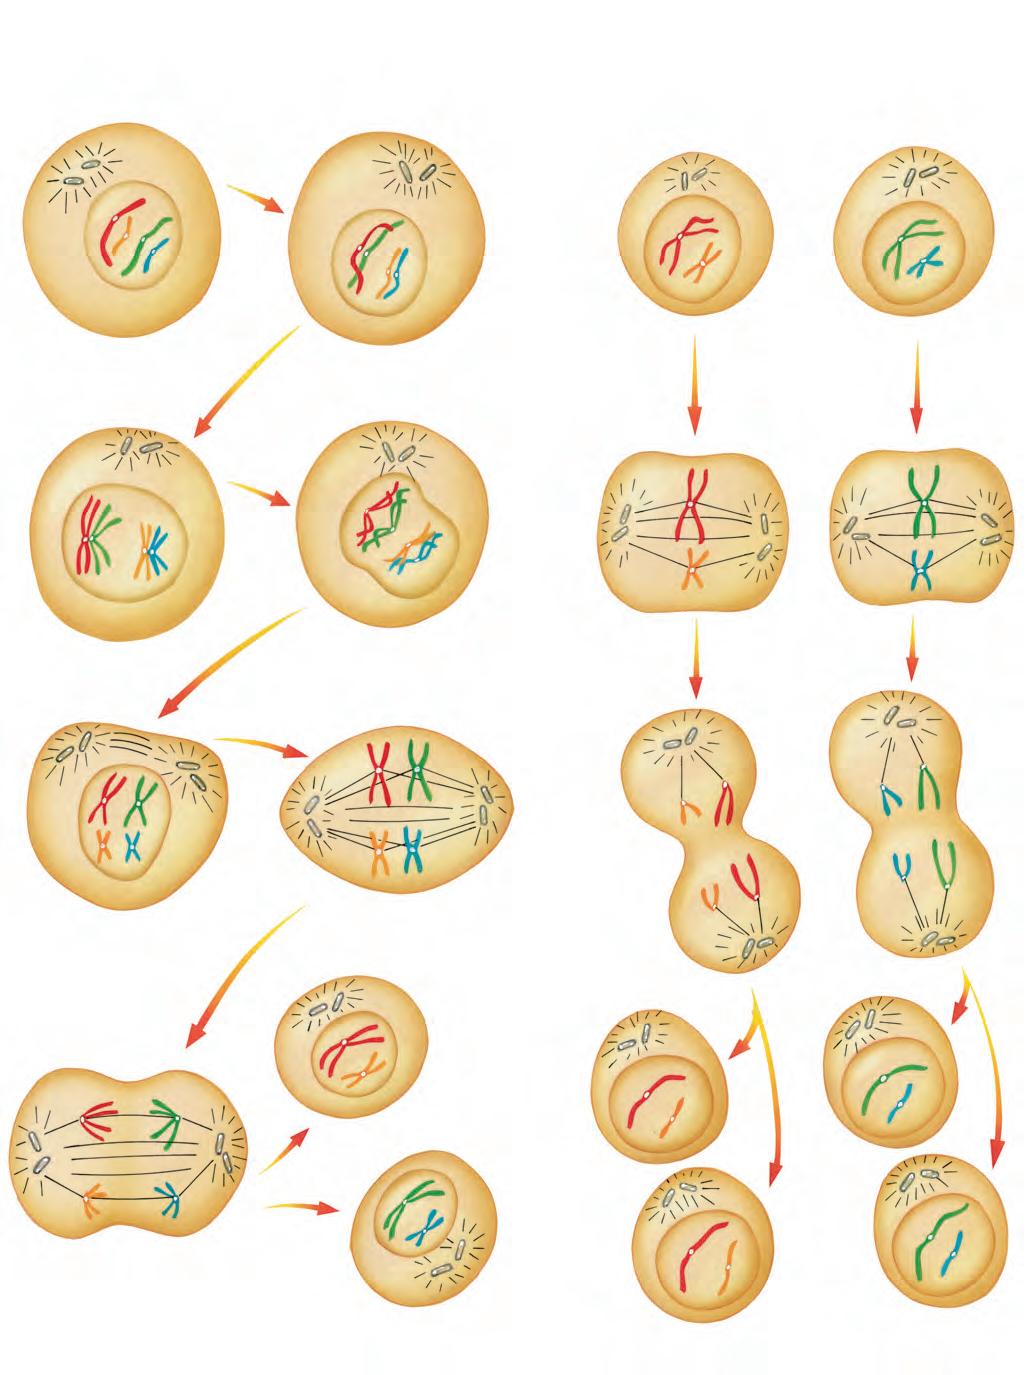
Les fases de la meiosi en una cèl·lula amb quatre cromosomes.
ESPERMATOGÈNESI OVOGÈNESI
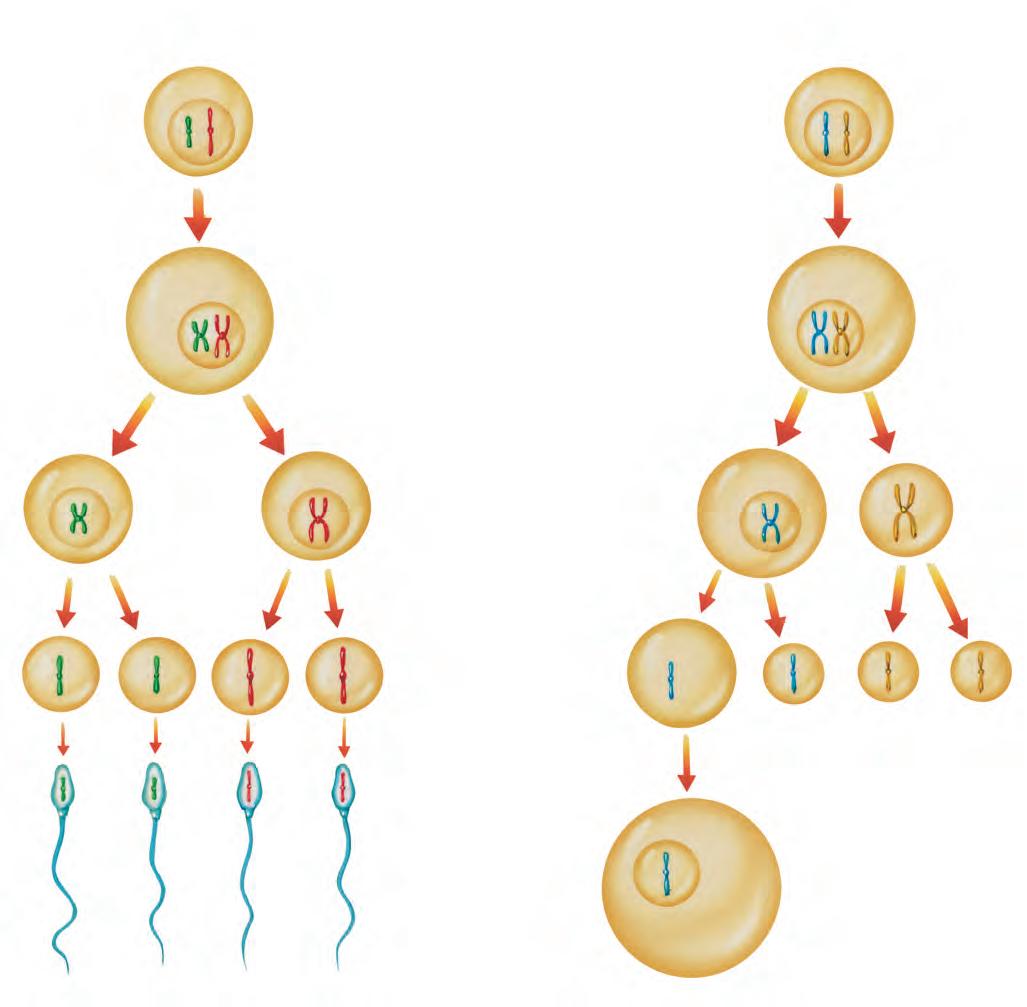
Espermatogoni (46 cromosomes)
Oogoni (46 cromosomes)
CREIXEMENT
Esquema general de l’espermatogènesi i de l’ovogènesi en l’espècie humana.
Espermatòcit de primer ordre
Ovòcit de primer ordre
MEIOSI I
Espermatòcit de segon ordre (23 cromosomes)
MEIOSI II
Ovòcit de segon ordre (23 cromosomes)
EspermàtidesOvòtides
MADURACIÓ
Espermatozoides (23 cromosomes)
Òvul (23 cromosomes)
Primer corpuscle polar
Segon corpuscle polar
El significat de la meiosi es pot resumir amb els tres punts següents:
1) En els organismes que es reprodueixen sexualment, la meiosi fa possible la conservació del nombre de cromosomes de generació en generació.
2) Amb la meiosi, els organismes amb reproducció sexual tenen unes possibilitats extraordinàries de canvis evolutius, gràcies a les opcions quasi inesgotables de recombinació genètica. L’entrecreuament de material genètic afavoreix la recombinació dels trets hereditaris materns i paterns fins a nivells virtualment il·limitats.
3) En els organismes en què la determinació del sexe és cromosòmica, la meiosi és la base de la regulació del sexe dels individus. Els individus d’un dels dos sexes produeixen, per meiosi, dos tipus de gàmetes, portadors d’un cromosoma X o d’un cromosoma Y, que originaran en la fecundació dos tipus d’individus: mascles i femelles.
Comparació entre la mitosi i la meiosi
Mitosi
Comprèn una divisió cel·lular que origina dues cèl·lules filles.
Divisió equitativa que separa les cromàtides germanes.
Els cromosomes no entren en sinapsi; no es formen quiasmes, ni hi ha, per tant, intercanvi de material genètic entre cromosomes homòlegs.
El contingut genètic dels productes de la mitosi és idèntic.
Les cèl·lules filles tenen el mateix nombre de cromosomes que la cèl·lula inicial.
Les cèl·lules somàtiques, quan es divideixen, ho fan, ordinàriament, per mitosi. D’aquesta manera, augmenta el nombre de cèl·lules durant el desenvolupament i el creixement.
Meiosi
Comprèn dues divisions cel·lulars que originen quatre cèl·lules filles.
La primera divisió és reduccional: separa els cromosomes homòlegs; la segona divisió és equitativa: separa les cromàtides germanes.
Els cromosomes entren en sinapsi, es formen quiasmes i hi ha intercanvi de material genètic entre homòlegs.
El contingut genètic dels productes de la meiosi és diferent.
Els productes meiòtics tenen la meitat de cromosomes que la cèl·lula inicial.
La meiosi és una divisió cel·lular lligada a la reproducció sexual. Es produeix una sola vegada al llarg del cicle biològic de l’organisme, en molts casos durant la formació dels gàmetes, que són les úniques cèl·lules haploides.
La meiosi és una divisió reduccional que inclou dues divisions cel·lulars successives i que dóna lloc, a partir d’una cèl·lula diploide, a la formació de quatre cèl·lules haploides.
3.18. Defineix el cicle cel·lular i enumera les fases que inclou. Què és la interfase? En quina fase del cicle cel·lular té lloc la duplicació de l’ADN?
3.19. Explica els principals canvis que es produeixen durant la fase G1 del cicle cel·lular.
3.20. Què és el rellotge del cicle cel·lular? Quines molècules intervenen en la seva regulació? Quins efectes contraposats produeixen?
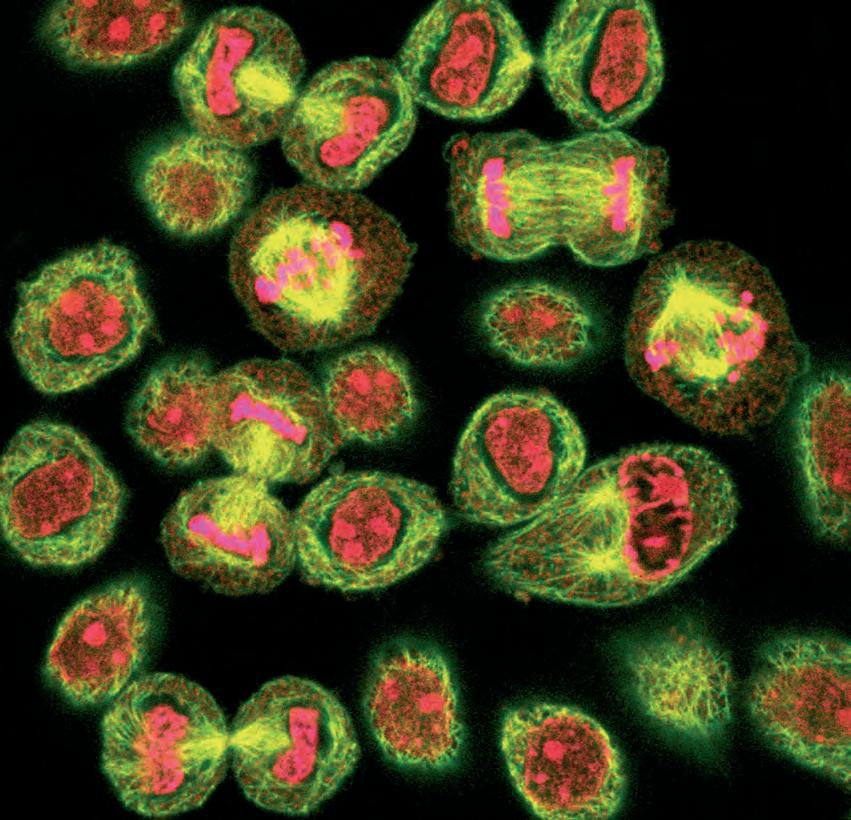
Cultiu de cèl·lules He-La en divisió al microscopi de fluorescència. S’observen nombroses interfases, però també les quatre fases mitòtiques. En la fotografia els cromosomes són de color rosa i els microtúbuls, grocs.
3.21. Defineix els conceptes de mitosi i meiosi, i explica quines són les diferències principals entre un procés i l’altre.
3.22. Explica el significat de la frase següent: «La meiosi fa possible la conservació del nombre de cromosomes.»
3.23. Defineix els conceptes següents: sinapsi, quiasma i entrecreuament
3.24. Per què la meiosi afavoreix molt la variabilitat genètica?
3.25. Descriu breument els fenòmens que tenen lloc durant la profase de la primera divisió meiòtica.
3.26. La llista següent fa referència als fets fonamentals que es produeixen durant el cicle cel·lular. Ordena la llista segons la seqüència en què aquests fets tenen lloc:
a) Situació dels cromosomes en el pla equatorial del fus mitòtic.
b) Reconstrucció de l’embolcall nuclear.
c) Duplicació de l’ADN.
d) Separació del citoplasma en dues parts diferents.
e) Desespirilització dels cromosomes.
f) Gran activitat de la síntesi de proteïnes i creixement de la cèl·lula.
g) Separació de les cromàtides i migració cap als pols respectius de la cèl·lula.
h) Espirilització i condensació de la cromatina i ruptura de l’embolcall nuclear.
3.27. Fent les consultes bibliogràfiques necessàries, explica en què consisteixen l’espermatogènesi i l’ovogènesi en l’espècie humana (lloc on es produeixen, moment en què es donen, productes que originen, etc.).
3.28. Digues si les frases següents són certes o falses:
– Tot l’ADN de la cèl·lula es troba al nucli.
– L’ARN ribosòmic se sintetitza al nuclèol.
– Les histones són glúcids que formen part de la cromatina.
– Els cromosomes comencen a ser visibles en iniciar-se la mitosi.
– En els mamífers les úniques cèl·lules haploides són els gàmetes.
– Tots el òvuls contenen un cromosoma X.
– Tots els espermatozoides contenen un cromosoma Y.
– La duplicació de l’ADN del nucli es produeix durant la metafase de la mitosi.
– En els animals la meiosi té lloc durant la gametogènesi.
– La mitosi és la divisió cel·lular durant la qual augmenta el nombre de cèl·lules en el procés de desenvolupament i creixement.
En els organismes pluricel·lulars, la proliferació de les cèl·lules té com a finalitat conservar el conjunt i fer que tot funcioni correctament, de manera que les mitosis i el creixement cel·lular només es produeixen sota una coordinació general.
El càncer és una malaltia cel·lular per la qual les cèl·lules proliferen exageradament a causa de mitosis repetides, i sovint anòmales, que condueixen a la formació d’una massa informe (tumor) que genera noves cèl·lules que es multipliquen sense tenir cap relació amb els teixits normals que l’envolten. Parlem de tumor maligne quan aquest tumor creix ràpidament, envaeix els teixits veïns i, mitjançant el torrent circulatori, es reprodueix en altres òrgans.
El terme càncer designa un nombrós grup de malalties que poden afectar gairebé tots els teixits del cos. Si bé cada tipus de càncer té unes característiques pròpies, els processos bàsics que els originen, en l’àmbit cel·lular i molecular, són molt similars i comencen a ser coneguts.
Les cèl·lules d’un individu sa viuen en una clara interdependència, en la qual les unes regulen el creixement i la proliferació de les altres. Les cèl·lules normals únicament es divideixen quan reben instruccions precises procedents de cèl·lules veïnes. Aquesta col·laboració assegura que cada teixit mantingui la grandària, la morfologia, etc., adequades a les necessitats del cos.
Les cèl·lules canceroses ignoren els controls normals de proliferació i segueixen unes instruccions internes de reproducció pròpies. La proliferació excessiva d’aquestes cèl·lules pot provocar que envaeixin els teixits veïns, i fins i tot poden desprendre’s del lloc originari i, mitjançant el torrent circulatori, migrar a òrgans allunyats i crear-hi nous tumors o metàstasis
Les cèl·lules que formen un tumor deriven d’una única cèl·lula, la qual en algun moment (generalment dècades abans que el tumor es manifesti) va experimentar una mutació que va alterar-ne el programa normal de proliferació. La transformació maligna d’una cèl·lula es produeix després per acumulació de mutacions en uns gens específics. El coneixement d’aquests gens i de la seva funció és la clau per entendre el càncer.
Hi ha dues classes de gens, els protooncogens i els gens supressors, que tenen un paper fonamental en l’inici del càncer. En les seves versions normals, aquests gens, mitjançant la codificació de proteïnes específiques, regulen el cicle cel·lular, és a dir, el creixement, la divisió i la proliferació cel·lular.
Sovint designem amb el terme càncer tot un nombrós grup de malalties que afecten òrgans i parts del cos ben diferents. Totes aquestes malalties tenen en comú un desajustament de la divisió cel·lular que porta a la proliferació exagerada de masses cel·lulars informes: els tumors.
La histopotologia, o estudi dels teixits patològics, és una tècnica bàsica en la recerca mèdica.
Hi ha dues classes de gens que tenen a veure amb el càncer: els protooncogens i els gens supressors.
L’Atles del Genoma del Càncer (TCGA) és un gran projecte de recerca iniciat l’any 2006 per diferents organismes de l’administració sanitària pública dels Estats Units per tal de detectar els canvis gènics implicats en els diferents tipus de càncers que afecten l’ésser humà. En aquest projecte s’estan analitzant mostres de tumors humans a partir de les tècniques de la seqüenciació del genoma (determinació de les bases de l’ADN) per identificar les mutacions gèniques associades a cada tipus de càncer. Les dades que s’obtinguin s’inclouran en una base de dades pública. El desenvolupament de l’Atles del Genoma del Càncer tracta d’obtenir dades sobre les bases biològiques del càncer, posar a punt proves per detectar la malaltia en les fases inicials, desenvolupar noves estratègies de prevenció del càncer i obtenir nous i específics tractaments contra els diferents tipus de càncer.
L’inici d’un càncer es produeix quan una cèl·lula normal pateix una mutació genètica que la fa proliferar de manera descontrolada.
Aquesta cèl·lula i la seva descendència conserven inicialment un aspecte i un funcionament normals, però es reprodueixen en excés. Es diu que experimenten un procés d’hiperplàsia.
Amb el temps, a més de dividirse descontroladament, aquestes cèl·lules comencen a presentar anomalies en la forma i en l’orientació en el teixit afectat. Es diu que el teixit presenta displàsia. S’origina així un càncer in situ, que encara no ha envaït els teixits propers i que es pot mantenir així durant molt temps.
Noves mutacions poden facilitar que les cèl·lules canceroses envaeixin els teixits veïns, cosa que genera un càncer invasiu o una massa tumoral maligna. Algunes cèl·lules malignes es poden desprendre i, gràcies al torrent circulatori, poden arribar fins a òrgans allunyats, on donaran lloc a nous tumors o metàstasis.
Els oncogens codifiquen proteïnes activadores de la multiplicació cel·lular, que porten a la formació de tumors. Les alteracions cromosòmiques, o l’acció d’alguns virus, el tabac i les radiacions són alguns dels factors que poden induir la transformació dels protooncogens en oncogens.
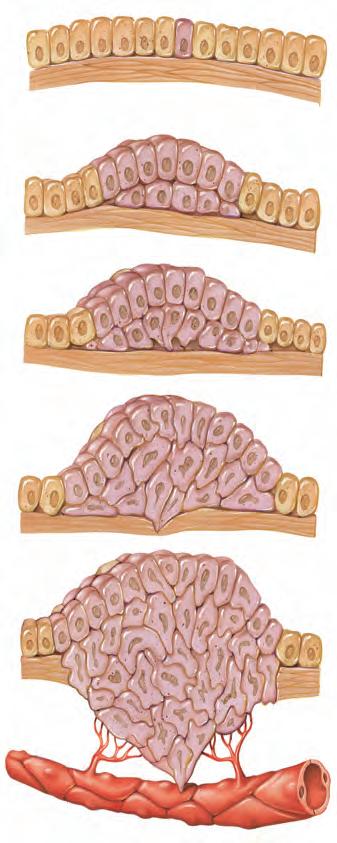
Els protooncogens codifiquen proteïnes (factor de creixement) que estimulen el creixement i la divisió cel·lulars. Són molt importants en determinades etapes de la vida, especialment durant el desenvolupament embrionari. Així mateix, alguns d’aquests gens continuen actius durant la vida adulta, ja que certs teixits necessiten que les seves cèl·lules es divideixin.
Els gens supressors tenen una funció contrària a la dels protooncogens: codifiquen proteïnes (proteïnes supressores de tumors) que controlen i inhibeixen el creixement i la proliferació de les cèl·lules.
En experimentar certes mutacions, els protooncogens es transformen en oncogens. En aquest estat, codifiquen proteïnes hiperactiva-
dores de la multiplicació cel·lular, amb un creixement anormal del teixit damunt el qual actuen. Es coneixen més d’un centenar d’oncogens implicats en el desenvolupament de tot tipus de càncers.
La transformació dels protooncogens en oncogens pot ser deguda a alteracions cromosòmiques, o a l’acció d’alguns virus, del tabac, de les radiacions, etc.
Els gens supressors codifiquen proteïnes que inhibeixen i reprimeixen el creixement de la cèl·lula i la seva degeneració. Quan una mutació els deixa inactius, desapareixen els frens que regulen la proliferació cel·lular. Exemples de gens supressors implicats en molts càncers són el P53 i el P16.
MORTALITAT PER CÀNCER A ESPANYA. ANY 2005
Morts per totes les causes 385056. Homes: 200162 (52%) Dones: 184894 (48%)
Morts totals per càncer: 96499 (25%). Homes: 60701 (63%) Dones: 35798 (37%)
Tipus de tumor Homes Dones
morts per càncer (%) morts per càncer (%) morts totals (%) morts totals (%)
(27,4%) (8,3%)
Càncers esporàdics i càncers familiars
La major part de càncers són esporàdics i poden ser causats per molts factors. Afecten qualsevol persona de qualsevol edat i sense que hi hagi cap antecedent en la família. Els tumors esporàdics no s’hereten; per tant, si una persona ha tingut un d’aquests tumors, no vol dir que els seus familiars hagin de tenir un risc més gran de desenvolupar-lo que els familiars d’una persona que no l’hagi tingut. Tampoc no se sap per què unes persones en tenen i les altres no.
La major part de càncers són esporàdics. Les principals causes ambientals que afavoreixen les mutacions genètiques que intervenen en el procés generador del tumor són el tabac i el tipus de dieta. Però hi ha altres factors cancerígens, com ara determinats microorganismes o productes químics.
La gran majoria de càncers esporàdics es desenvolupen per acumulació de mutacions successives en els gens que intervenen en el procés generador del tumor. En la major part de casos, no naixem amb aquests gens ja alterats, sinó que al llarg de la vida les successives mutacions es van acumulant. No obstant això, algunes persones neixen amb algun d’aquests gens ja mutats i, per tant, amb un risc molt gran de desenvolupar un determinat tipus de càncer. En aquest cas, parlem de càncers familiars (càncer de còlon familiar, càncer de pit familiar, etcètera), els quals són deguts a una causa genètica i es caracteritzen perquè en certes famílies apareix una proporció més elevada de parents, especialment de primer grau, que presenten el mateix tipus de càncer. Els càncers familiars representen, segons els coneixements actuals, aproximadament el 5% dels càncers.
5.2.L’origen del càncer: causes genètiques i causes ambientals
Les causes de l’origen del desenvolupament del càncer poden ser genètiques o ambientals. Les primeres són per l’acumulació d’errors genètics sense relació amb influències externes, i estan vinculades, en un grau més o menys elevat, a l’herència. Les segones, en canvi, consisteixen en tots aquells agents o factors cancerígens aliens a la persona, i que no estan vinculats a l’herència.
Ovòcit humà vist al microscopi electrònic de transmissió. En el nucli, hi destaquen els cromosomes (grocs) i en el citoplasma, els mitocondris (verds). Els agents cancerígens poden induir modificacions en els gens del nucli cel·lular.
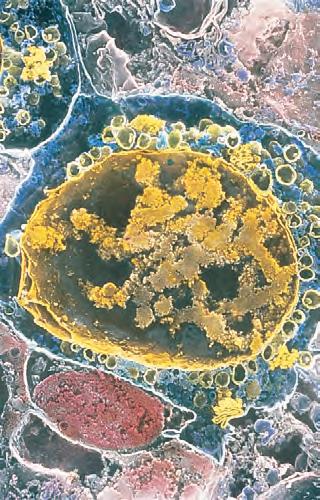
Encara no s’ha establert amb claredat la incidència d’aquests dos tipus de causes en la major part de càncers. En alguns càncers, la «càrrega» genètica predominarà sobre la «càrrega» ambiental, i en altres serà a l’inrevés. En parlar de causes genètiques d’un càncer, cal aclarir que no es vol dir que una persona patirà sens dubte un tipus de càncer determinat, sinó que el risc que té aquella persona de patir-ne serà més gran.
Pel que fa a les causes ambientals, els factors cancerígens presents en el medi són molts i de naturalesa molt diversa. El tabac i el tipus de dieta són considerats els dos principals agents cancerígens. També són agents cancerígens clars certs microorganismes, com ara alguns virus i alguns bacteris. D’altra banda, diferents tipus de radiacions i de productes químics estan clarament relacionats amb diversos tipus de càncers.
El consum de tabac està relacionat, sens dubte, amb el càncer de pulmó i d’altres òrgans de l’aparell respiratori, com ara els bronquis o la laringe. També influeix en el càncer de llengua i del llavi inferior. Les relacions entre el càncer i la dieta són també molt clares. De fet, una ingestió excessiva de greixos saturats i de carn vermella està relacionada amb els càncers d’estómac, de còlon i de recte; un consum elevat de sal i d’aliments fumats té a veure amb el càncer d’estómac; les dietes pobres en fruita i verdura afavoreixen el desenvolupament de càncers dels òrgans de l’aparell digestiu, i el consum excessiu d’alcohol potencia l’aparició de càncers a l’aparell digestiu. D’altra
banda, la cirrosi hepàtica, que sovint és conseqüència de l’alcoholisme crònic, degenera amb molta freqüència en càncer de fetge.
Dins dels virus cancerígens, cal fer esment dels papilomavirus, relacionats amb els càncers d’úter; dels virus de l’hepatitis B i C, relacionats amb el càncer de fetge, i del virus VIH, causant de diversos tipus de càncer relacionats amb la sida.
Entre els bacteris, l’helicobacteri (bacteri en forma d’espiral) de l’espècie Helicobacter pylori està relacionat amb alguns casos de càncer d’estómac.
Pel que fa a la relació entre les radiacions i el càncer, l’exposició a les radiacions solars, especialment als raigs ultraviolats, està relacionada amb el melanoma (un dels càncers de la pell). Aquesta exposició és especialment perillosa en la infància. També cal remarcar que les radiacions generades en les reaccions nuclears i les emeses pels materials radioactius són clarament i greument cancerígenes.
Finalment, està ben demostrat que certes substàncies químiques, habituals en diverses activitats industrials, són importants agents cancerígens. En són bons exemples l’arsènic, l’amiant, el benzè, algunes fibres artificials, el formaldehid, alguns pesticides, el sutge, etc.
• L’any 2005 quasi 3 de cada 1000 homes i quasi 1,7 de cada 1000 dones van morir de càncer a Espanya.
• Es preveu que un de cada 3 homes i una de cada 5 dones patiran un càncer al llarg de la seva vida.
• L’edat mitjana dels homes que moren de càncer és de 69,3 anys i de 69,7 pel que fa a les dones.
• La mortalitat per càncer a Espanya es considera, en comparació amb els països de l’entorn, una mica alta entre els homes i baixa entre les dones.
• El nombre de casos de càncer que es diagnostiquen cada any augmenta, però la mortalitat global disminueix.
• El nombre de diagnòstics de càncer colorectal és el que més ha augmentat en els darrers anys.
• En l’actualitat, de les persones diagnosticades de càncer cada any un 44% dels homes, un 56% de les dones, un 76% dels adolescents i un 72% dels infants afectats sobreviuen al diagnòstic després de 5 anys.
• El consum de tabac està associat a diferents tipus de càncer, en especial al de pulmó. El càncer de pulmo és sens dubte el que causa un nombre de morts més elevat i el que més creix entre la població femenina.
• En el melanoma, o càncer de cèl·lules de la pell, el principal factor de risc és l’exposició al sol, especialment durant la infància. L’ésser humà de pell blanca el desenvolupa 40 vegades més que el de pell negra.
• L’herència familiar és l’origen d’un important nombre de càncers de còlon.
El codi europeu del càncer
La Unió Europea ha elaborat un decàleg amb deu normes senzilles molt útils per prevenir alguns tipus de càncer. A Catalunya, aquest decàleg és avalat per l’Institut Català d’Oncologia, i els consells a seguir són els següents:
Per a tothom
1. No fumeu. Si sou fumador deixeu de fumar al més aviat possible. Si no fumeu, no comenceu a fumar.
2. Modereu el consum d’alcohol, ja sigui cervesa, vi o licors.
3. Mengeu diàriament verdures i fruites fresques. Mengeu sovint cereals amb un alt contingut de fibra.
4. Eviteu l’excés de pes, feu exercici físic i limiteu el consum d’aliments rics en greixos.
5.Eviteu l’exposició excessiva al sol i les cremades produïdes pel sol, especialment durant la infantesa.
6. Respecteu estrictament les normes adreçades a evitar qualsevol tipus d’exposició a substàncies considerades cancerígenes. Acompliu totes les instruccions de salut i seguretat en relació amb les substàncies que puguin causar càncer.
7. Consulteu el vostre metge si noteu algun bony, una ferida que no cicatritza, una piga que canvia de forma, volum o color, o qualsevol pèrdua anormal de sang.
8. Consulteu el vostre metge en cas de trastorns persistents, com ara tos o ronquera permanents, canvi en els vostres hàbits intestinals, alteracions urinàries o pèrdua anormal de pes.
Per a les dones
9. Feu-vos una citologia regularment. Participeu en els programes organitzats de detecció precoç de càncer de coll d’úter.
10. Examineu els vostres pits regularment. Si teniu més de 50 anys, participeu en els programes de detecció precoç del càncer de mama.
• Segons alguns estudis epidemiològics, en el càncer de coll d’úter, les relacions sexuals en edats molt joves i la promiscuïtat sexual són importants factors de risc.
• Els programes de detecció i prevenció de certs tipus de càncer, com ara la realització sistemàtica de mamografies a les dones a partir dels 50 anys i de citologies de l’úter, comencen a donar resultats positius importants pel que fa a l’augment de la supervivència i a la reducció de la mortalitat.
• Recentment s’ha autoritzat i comercialitzat la vacuna contra el virus de papiloma humà, responsable del càncer de coll d’úter, el contagi del qual es produeix principalment per contacte sexual. La sanitat pública espanyola ha iniciat un vacunació gratuïta de les adolescents abans de l’inici de l’activitat sexual.
3.29. Què és un càncer? Què diferencia una cèl·lula normal d’una cèl·lula cancerosa?
3.30. Explica què és un càncer invasiu. Explica també què són una displàsia i una hiperplàsia.
3.31. Què és un melanoma? Quin es creu que és el principal factor de risc relacionat amb aquest tipus de càncer?
3.32. Explica les principals diferències que hi ha entre els càncers esporàdics i els càncers familiars.
3.33. Esmenta tres agents cancerígens i explica amb quin tipus de càncer estan relacionats.
3.34. Explica breument les bases cel·lulars i moleculars del càncer. Quina és la diferència entre un càncer in situ i una metàstasi?
3.35. Com s’anomenen les dues menes de gens que intervenen en el desenvolupament dels diferents tipus de càncers? Explica breument com porten a terme la seva funció.
3.36. Explica la relació existent entre un oncogen i un protooncogen.
3.37. Quins són els principals agents microbians relacionats amb el desenvolupament dels càncers? Posa’n tres exemples concrets.
3.38. Quins són els mecanismes de control del cicle cel·lular?Quines molècules hi intervenen?
3.39. En el dibuix de sota, es representa un cromosoma profàsic i un altre de metafàsic. Escriu quin nombre correspon a cada una de les parts següents: centròmer, cromàtida, ADN i braços.
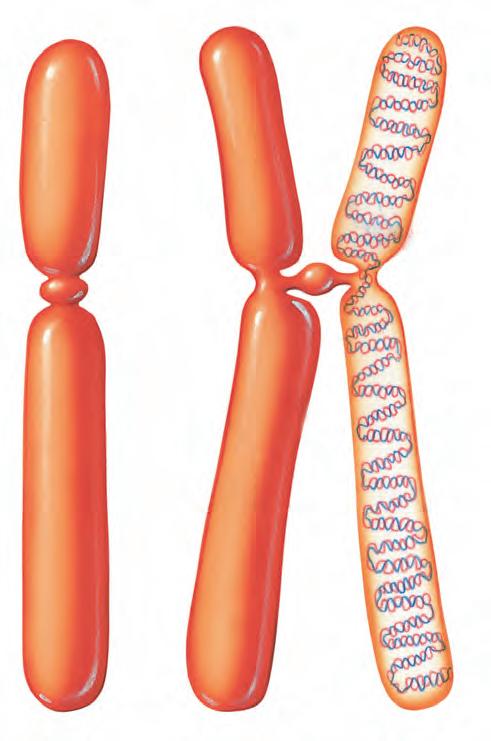
3.40. Copia les frases següents i escriu al costat de cada una d’elles si és certa o falsa:
a) El nucli cel·lular conté tot l’ADN de les cèl·lules eucariotes.
b) El nuclèol és el principal lloc de síntesi d’ARN.
c) El medi interior del nucli també s’anomena cariolimfa, nucleosoma i cromatina.
d) Els cromosomes i les fibres de cromatina són dos estadis diferents del mateix material biològic.
e) Per cariotip s’entén el conjunt i les característiques dels cromosomes de les cèl·lules dels individus d’una espècie.
f) Les cèl·lules haploides tenen un nombre senar de cromosomes.
g) L’ADN del nucli de les cèl·lules es duplica abans de començar la mitosi.
h) Els cromosomes són els orgànuls del nucli cel·lular portadors de l’herència biològica.
i) El cariotip humà està format per 45 cromosomes.
j) El contingut genètic de les cèl·lules resultants de la meiosi és diferent del de la cèl·lula inicial.
k) La mitosi origina cèl·lules haploides.
l) La meiosi origina quatre cèl·lules haploides a partir d’una cèl·lula diploide.
3.41. Explica l’enunciat de la llei de la constància numèrica dels cromosomes.
3.42. Explica el significat de les afirmacions següents:
a) En els organismes unicel·lulars, la mitosi és un sinònim de reproducció.
b) La meiosi és una divisió reduccional.
3.43. Esmenta alguns teixits, animals o vegetals, les cèl·lules dels quals experimentin mitosi al llarg de tota la vida de l’organisme a què pertanyen. Esmenta també dos teixits humans constituïts per cèl·lules que no es divideixen al llarg de la vida.
3.44. Copia l’esquema mut de la gametogènesi que hi ha en la pàgina següent i completa’l amb la dotació cromosòmica dels quatre zigots possibles, resultants de la fecundació de l’òvul per part dels espermatozoides. Indica-hi, també, el sexe que tindrà cada individu resultant del desenvolupament dels zigots.
1. En la fotografia següent es veuen cèl·lules de l’arrel d’una planta superior en diversos estadis del cicle cel·lular. Indica a quina fase es troben les cèl·lules assenyalades amb fletxes.
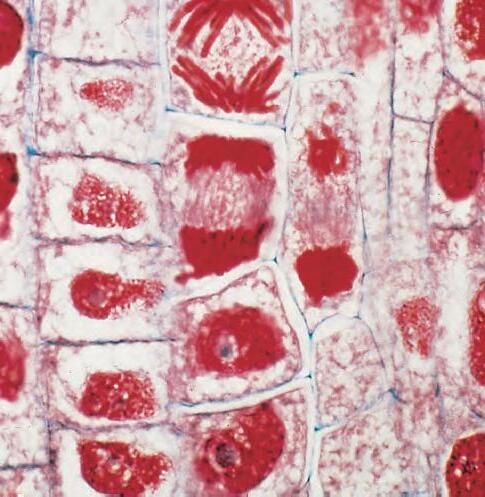
2. Copia i relaciona cada paraula o sintagma del primer grup amb el corresponent del segon grup:
Primer grup: cèl·lula haploide, cromosomes sexuals, telòmer, nuclèol, homogamètic, meiosi, cariotip humà, espermatozoide humà, cariolimfa.
Segon grup:síntesi de l’ARN, 46 cromosomes, cromosomes sexuals iguals, 23 cromosomes, amb n cromosomes, extrem d’un cromosoma, heterocromosomes, nucleosoma, gametogènesi.
3. Les frases que hi ha a continuació fan referència als fets fonamentals que es produeixen durant el cicle cel·lular. Copia-les segons l’ordre en què es produeixen aquests fets:
a) Col·locació dels cromosomes en el pla equatorial del fus mitòtic.
b) Reconstrucció de l’embolcall nuclear.
c) Duplicació de l’ADN.
d) Separació del citoplasma en dues parts diferents.
e) Desespirilització dels cromosomes.
f) Gran activitat de la síntesi de proteïnes i creixement de la cèl·lula.
g) Separació de les cromàtides i migració cap als pols respectius de la cèl·lula.
h) Espirilització i condensació de la cromatina i ruptura de l’embolcall nuclear.
4. Completa cada una de les frases següents amb la resposta o respostes correctes:
• En la fase S del cicle de la cèl·lula hi té lloc…
a) …la duplicació de l’ADN.
b) …la duplicació dels centríols.
c) …la desaparició de la membrana cel·lular.
d) …la formació del fus acromàtic.
• Les cèl·lules haploides s’originen…
a) …per mitosi d’una cèl·lula diploide.
b) …per meiosi d’una cèl·lula diploide.
c) …per bipartició d’una cèl·lula haploide.
d) …per mitosi d’una cèl·lula haploide.
• La cromatina és un material genètic que…
a) …es troba en el nucli i en els ribosomes.
b) …està format per proteïnes histones i ADN.
c) …es condensa en forma de cromosomes.
d) (Cap de les tres anteriors.)
• El nombre de cromosomes dels gàmetes d’un organisme amb 2n = 12 és de…
a) …sis cromosomes iguals.
b) …sis cromosomes diferents.
c) …sis cromosomes iguals dos a dos.
d) …dotze cromosomes iguals dos a dos.
• Els cromosomes són uns orgànuls que…
a) …estan formats per ARN i polisacàrids.
b) …es fan visibles quan comença la mitosi.
c) …sintetitzen les proteïnes.
d) …estan formats per fibres condensades de cromatina.
Objectiu
Observacions de cromosomes i de diferents fases de la mitosi.
Material
– Microscopi (objectiu x 100).
– Portaobjectes i cobreobjectes.
– Llanceta emmanegada.
– Tisores de punta fina.
– Paper de filtre.
– Fogonet.
– Colorants: orceïna A i orceïna B.
– Arrels joves de ceba.
– Larves de Drosophila melanogaster.
a)Observació de cèl·lules d’arrel de ceba en diferents fases de mitosi
A les arrels joves de les plantes, en la ceba especialment, hi trobem un teixit, el meristema –en creixement continu i ràpid–, que és molt adequat per observar cèl·lules en diferents fases de la divisió cel·lular o mitosi.
Per obtenir les arrels, posa una ceba dins un recipient amb aigua de manera que només la part inferior de la ceba toqui l’aigua. Necessitaràs uns colorants específics per a la tinció dels cromosomes: orceïna A i orceïna B.
El procediment per observar cèl·lules mitòtiques inclou les fases següents:
a) Amb unes tisores de punta fina, talla els últims mil·límetres de la punta de les arrels joves de ceba i posa-les en la part central d’un portaobjectes ben net.
b) Tira unes quantes gotes d’orceïna A damunt els fragments de les arrels.
c) Escalfa, suaument i per sota, el portaobjectes amb la flama d’un fogonet fins que surti vapor; evita que el colorant arribi a bullir. Repeteix aquesta operació dues o tres vegades fins que els fragments de les arrels agafin un color vinós.
d) Deixa’l refredar i, a continuació, afegeix-hi unes gotes d’orceïna B. e) Posa el cobreobjectes i, damunt, un fragment de paper de filtre doblegat dos o tres cops.
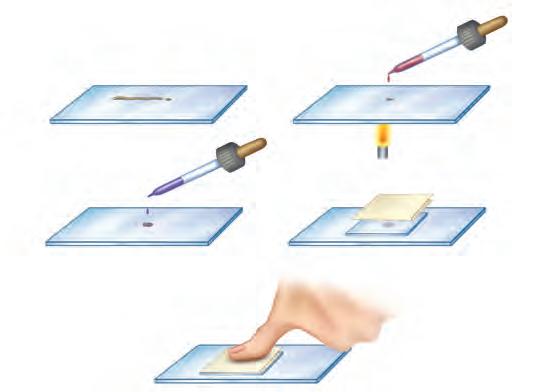
f) Amb el dit gros, prem amb força el cobreobjectes, sobre una superfície plana, per tal de rebentar l’arrel i distribuir en una capa ben fina totes les cèl·lules.
g) Comença a observar la preparació al microscopi amb poc augment, fins a localitzar les cèl·lules meristemàtiques, petites i cúbiques. Un cop localitzades, fes servir un augment més gran. Si has fet la preparació correctament, observaràs cèl·lules en diferents fases de la mitosi.
b)Observació de cromosomes gegants de les glàndules salivals de Drosophila
Utilitzarem larves del tercer estadi larvari i ben desenvolupades de Drosophila melanogaster. El procediment inclou les fases següents:
a) Col·loca la larva ben desenvolupada sobre un portaobjectes, subjecta-la amb una llanceta, i amb unes pinces estira’n suaument les peces bucals (que es destaquen pel color fosc), fins a arrencar-les.
b) Si l’operació ha reeixit, darrere les peces bucals seguiran les glàndules salivals –on hi ha els cromosomes gegants que volem observar–, i potser altres fragments de l’aparell digestiu. Les glàndules salivals (parells) es distingeixen per l’aspecte filamentós i translúcid.
c) Amb agulles emmanegades, retira del portaobjectes tot el que no siguin les glàndules salivals, i amb una goteta d’aigua acaba de netejar-lo. A continuació, amb una mica de paper de filtre, eixuga’l des de les vores.
d) Immediatament, fes-ne la tinció amb orceïna aceticolàctica durant 20 o 30 minuts.
e) En acabat, posa-hi un cobreobjectes i pressiona amb força amb el dit polze sobre una superfície plana, tal com has fet en l’activitat anterior.
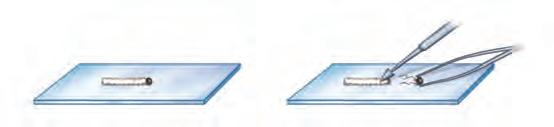
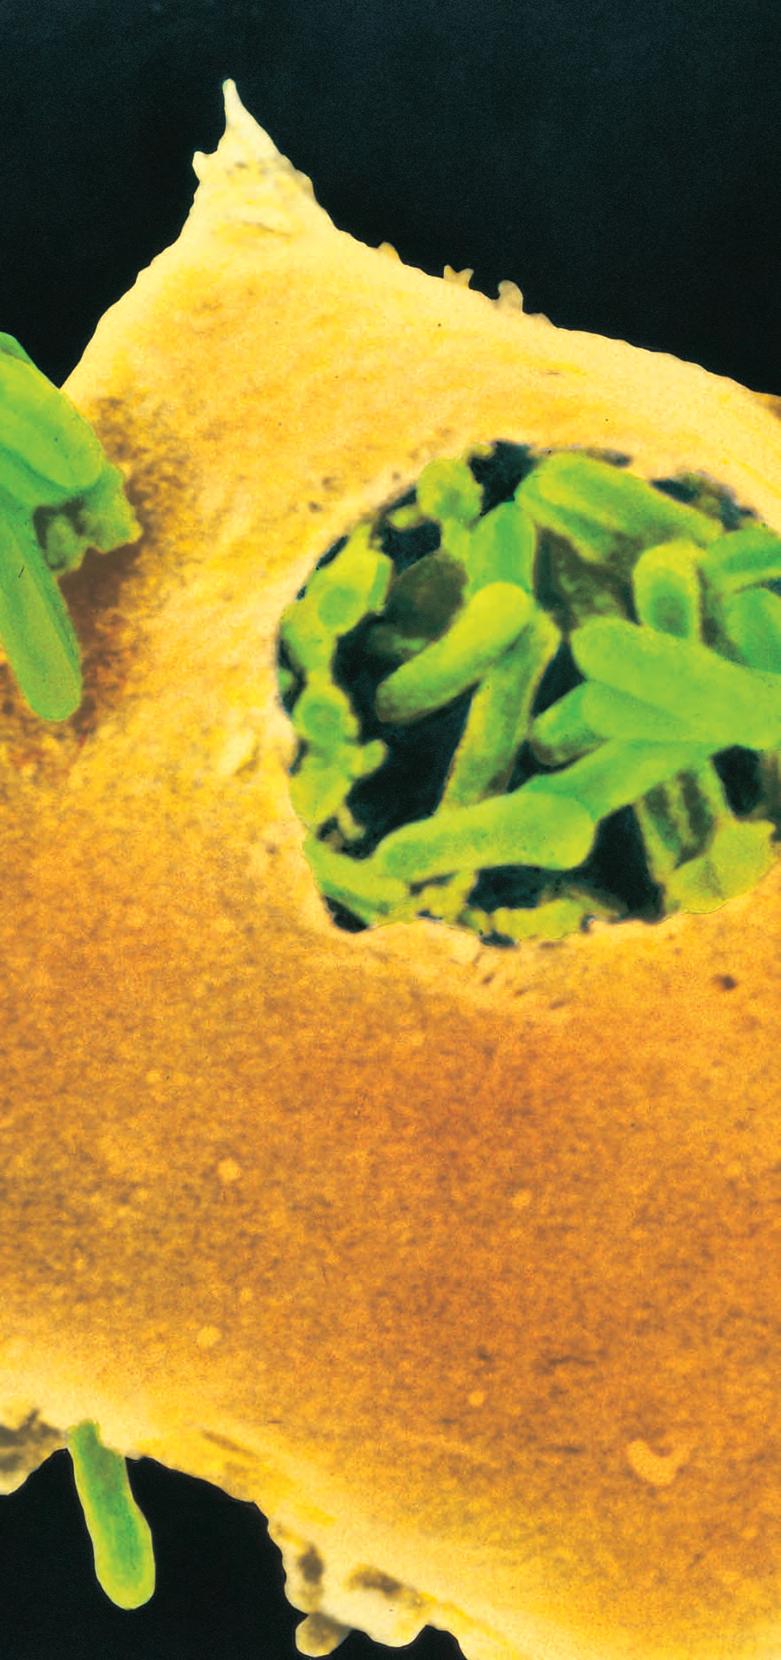
1.Lacomunicaciócel·lular
2.Leshormones: missatgersquímics
3.Elsistema hipotàlem-hipòfisi
4.Laneurona
5.Elsistemaimmunològic Esquema
Macròfagfagocitantcèl·lulesprocariotes.
Enelsorganismespluricel·lulars,lescèl·lulesnofuncionenaïllades.Elsprocessosdecomunicació entrelescèl·lulesesrealitzengràciesal’acciócombinadadelsistemanervióscentralidelsistema endocrí(hormonalohumoral).Mentrequeelsistemanervióstransmetelssenyalsmitjançantunes xarxesocircuitsdeneuronesdirectamentsobrel’òrganqueconvingui,enelsistemaendocríels missatgers,les hormones,actuenadistànciadelsòrgansquelessecreten.Deladefensadelsorganismescontral’entradad’agentspatògensodesubstànciesalienes(antígens),sen’encarrega el sistemaimmunològic.
Entotselséssersvivents,elmediintern,queésunveritableproductedel’organisme,conservalesrelacionsnecessàriesperalscanvisielmantenimentdel’equilibri.
Enelsorganismespluricel·lularslescèl·luleshandecoordinarelpropicomportament,iperfer-honecessitencomunicar-se.Tenimmés coneixementsdecomescomuniquenlescèl·lulesdelsanimalsqueno paslesd’unaplanta.Aquestescomunicacionsentrelescèl·lulessón vitalsperalconjuntdel’organisme.Duranteldesenvolupamenten depènlafuncióquefaràcadacèl·lulaisicontinuaràviva,siesdividiràosimorirà.Enl’adult,lacomunicaciócel·lularpermetintegrar l’activitatendefensaibeneficidelconjunt.
Lacomunicacióentreelséssershumansesdesenvolupaenàmbits diferents,desdelesconversesíntimes–caraacaraopertelèfon–fins alsmissatgesadreçatsatotalapoblació–anuncispublicitaris,avisos deperill,etc.–.Aixòtambésucceeixenlacomunicaciócel·lular,enla qualsemprehihaunacèl·lulaqueemetun senyal iuna cèl·luladiana queelcapta.
Elmecanismedecomunicaciócel·lularméscomúésl’endocrí:senyalsadreçatsatotelcosmitjançantmolèculessenyalitzadores–hormones–abocadesalasangenelcas delsanimalsolasabaenelcasdeles plantes.Menyscomunaéslacomunicació paracrina ,enlaqualles molèculessenyalitzadores– mediadorslocals–esdifonenlocalment enelteixitafectatiexerceixenlaseva funciósobrelescèl·lulesveïnes.Les respostesd’inflamacióidecicatritzaciódavantagressionslocalsesprodueixend’aquestamanera.
La comunicaciónerviosa ésuntercertipusdesenyalitzacióqueesrealitzamitjançant impulsoselèctrics queviatgenagranvelocitat(finsa 100m/s–1)atravésdelsaxonsdeles neurones.Enleszonesdecomunicacióentreneurones(lessinapsis)l’impulselèctricprodueixlasecreciód’una substànciaquímicao neurotransmissor queindueixlacontinuïtatdel’impulselèctricenlaneuronareceptora.
Lescèl·lulesanimalsdisposend’un conjuntdeproteïnesreceptores–diferents segonseltipusdecèl·lula–queels permetenrespondreadiversossenyals pertaldesobreviure,dividir-se, diferenciar-seiespecialitzar-se.Sino rebenelssenyalsadequats,lescèl·lules experimentenl’apoptosi, ésadir,la mortcel·lularprogramada.
Lasenyalitzaciócel·lular
Comunicacióendocrina
Cèl·lulaendocrina
Hormona
Enelscasosa,bic,moltesdeles molèculessenyalitzadoressónles mateixes.Lesdiferènciesrauenenla velocitatdelacomunicacióienla selectivitatambquèelssenyalssón distribuïtsalescèl·lulesdiana.Enelcas d,lescèl·lulesentrenencontactedirecte atravésdelessevesmembranes.
Fluxsanguini
Comunicacióneuronal
Neurones Axó
Receptor
Comunicacióparacrina
Cèl·lula senyalitzadora
Mediador local
Cèl·lules diana
Sinapsi Cèl·lulesdiana
Neurotransmissor Cèl·lula diana
Comunicaciódependentdecontacte
Cèl·lulasenyalitzadoraCèl·luladiana
Molèculasenyalitzadora unidaalamembrana
Finalment,enlacomunicació dependentdecontacte nosesecretacapmolècula,jaquelescèl·lulesentrenencontactedirectemitjançantmolèculessenyalitzadoresdelasuperfíciecel·lular.
Elsmecanismesdelacomunicaciócel·lularques’hanestudiatpermetenfer-seunaideadelaprecisióicomplexitatdelsistema:
–Unmateixsenyalnoafectatoteslescèl·lules,sinótansolsaquellesquetenenelreceptorapropiat(lesaltressón«cegues»peraaquest senyal).
–Unmateixsenyalpotinduirrespostesdiferentsencèl·lulesdiferents.Perexemple,lacèl·lulacardíacaresponal’acetilcolinadisminuintelritmedecontracció,mentrequelacèl·luladelaglàndulasalivalhofasecretantsaliva.
–Lapresènciad’unsenyaldeterminatmodificalarespostacel·lular aunaltresenyal.Aixòsignificaquediferentssenyalsrebutsconjuntamentpodenprovocarrespostesquevanmésenllàdelasumadela respostaacadasenyal.
–Elssenyalsmodifiquenelcomportamentdelescèl·lules.Elsque determinencanvisenelmoviment,enlasecrecióoenelmetabolismecel·lularsolensermoltràpids.Encanvi,elssenyalsrelatiusalcreixementiladivisiócel·lularsónméslentsperquèimpliquenl’expressiódegensilasíntesideproteïnes.
1.1.Proteïnesreceptoresicascadesdesenyalització
Larecepciós’iniciaquanelsenyaltrobaunamolèculadiana enlacèl·lula,gairebésempre una proteïnareceptora queen moltscasosestàsituadaala superfíciecel·lular.Lesmolèculesreceptoresmésnombroses sónlesqueestanassociadesa les proteïnesG,sibéhiha altresproteïnesreceptoresassociadesa canalsiònics dela membrana.Elfluxd’ionsgeneraunimpulselèctric,elqual s’utilitzaperalatransmissió ràpidaenelsistemanerviós.
Avegades,però(iaquestés elcasdel’òxidnítric,deleshormonesdelatiroideideleshormonesesteroideescomarael cortisol,l’estradiolilatestosterona),elsenyalpenetraal’interiordelacèl·lulaoneslocalitzalaproteïnareceptora.
Enqualsevoldelscasos,la proteïnareceptoratransforma elsenyalieltransmet,amplificatenunaformamolecular (mediador)comaral’ AMP cíclic,alsindretsdelacèl·lula onesproduiranlesrespostes. Eneltranscursd’aquestprocés, elsenyalpotsermodulatper factorsexternsointernsala cèl·lula.
Ràpid (desegons aminuts)
Molèculasenyalitzadoraextracel·lular
Viasenyalitzadora intracel·lular
Receptor desuperfície
ADN ARN
Funció proteica alterada Expressiógènicaalterada
Maquinàriacitoplasmàtica alterada
Comportamentcel·lular
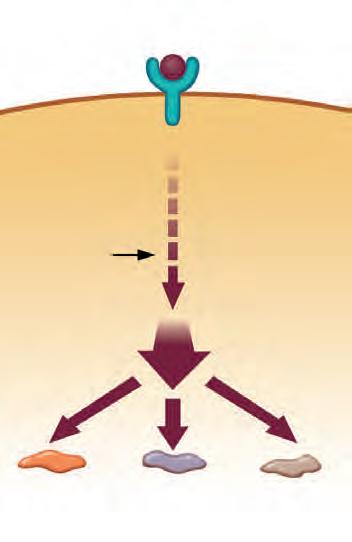
Receptor
Transmissió
Modulació peraltres factors
Lent (deminuts ahores)
Lesrespostesasenyalsexternsque impliquencanvisenelmetabolisme,enla secrecióoenelmovimentcel·lularsón ràpides.Encanvi,lesquehandeposar enmarxalamaquinàriagenètica(les relativesalcreixementiladivisió cel·lular)sónméslentes.
Amplificació
Divergència acèl·lules diana
Regulació d’unavia metabòlica
Regulació del’expressió gènica
Canvisenel citosquelet
Algunesrespostescel·lularsenquèintervél’AMPcíclic Hormona
Adrenalina Cor
Teixitdiana Resposta
Augmentdelavelocitatide laforçadecontracció
Adrenalina ACTH
Múscul
Adrenalina,ACTH iglucagó
Adipós
Catabolismedelglucogen
Catabolismedelsgreixos
CàpsulasuprarenalSecreciódecortisol
Enelsprocessosdecomunicaciócel·lular, lafisiologiadelamembranaplasmàtica ésclauperalatransmissióilarecepció correctadelssenyals.
Uncoprebuts,aquestssenyals modifiquenlarespostacel·lular.
Classificacióquímica deleshormones
– Hormonespeptídiques. Estan formadespercadenesd’aminoàcids,sónhidrosolublesiesfixena receptorsdelasuperfíciedeles cèl·lulesdiana.Ensónexemplesla insulina,elglucagó,lasomatotropina,etc.
– Hormonesderivadesd’aminoàcids. Sónhidrosolublesilamajoria actuensobrereceptorsdelasuperfíciedelescèl·lulesdiana.En sónexemplesl’adrenalina,lanoradrenalina,latiroxina,etc.
– Hormoneslipídiquesoesteroides. Lamajoriasónderivadesdel colesterol,sónliposolubles,travessenlamembranacel·lularis’uneixenareceptorsdelcitosol.Esdivideixenenandrògens(hormones sexualsmasculines)iestrògens (hormonessexualsfemenines).
Leshormonessónsubstànciesquímiquessecretades,enquantitatmolt petita,perles glàndulesendocrines itransportadesmitjançantlasang finsales cèl·lulesdiana ,onindueixenunaresposta.L’endocrinologia éslabrancadelamedicinaqueestudiael sistemaendocrí,ésa dir,lesglàndulesendocrines,leshormonesquesecreten,l’acciód’aquesteshormonesilesmalaltiesoriginadesperunfuncionamenthormonalinadequat.
Leshormonesintervenenenlaregulaciódenombrosesfuncions:el creixement,ladiferenciaciósexual,elcontroldelareproducció,la regulaciódelatemperaturacorporal,laregulaciódecontingutdeglucosaalasang,larespostadavantdesituacionsdeperill,etc.Actuen sempreadistànciadelesglàndulesquelessecreteniladuradadela sevaacció,queoscil·laentrepocsminutsiunsquantsdies,ésmés llargaqueladel’acciódelsistemanerviós.Unavegadafinalitzadala sevaacció,sóndegradadesalfetgeieliminadesperl’orinaolabilis.
Leshormonesnoesmetabolitzenaproductesútils,notenenacció enzimàticaniintervenendemaneradirectaenl’activitatcel·lular.Portenatermelasevafuncióunint-seareceptorscel·lulars.Lamajorpart deleshormonessónmoltespecífiquesiactuensobreteixitsmoltconcrets,estimulantoinhibintlasevafunció,osobreunareacciómetabòlicaconcreta.
2.1.Elsmecanismesd’acciódeleshormones
L’acciódeleshormonesesbasaenlasevacapacitatperunir-seamolèculesespecífiquesdelescèl·lulesdianaiformarelcomplex hormonareceptor cel·lular.Leshormonespeptídiquesilamajorpartdelesque esderivend’aminoàcidsnopodentravessarlamembranadelescèl·lules dianais’uneixenareceptorsqueestrobenenlamembranaplasmàtica.Elcomplexhormona-receptorindueixlaformació,enelcitosol, d’unsegonmissatgerqueactivaundeterminatefectemetabòlic.Aquesteshormonessónd’accióràpidaidecurtadurada.
Algunesvegades,diversoscomplexoshormona-receptors’agrupeni sónenvoltatsperunainvaginaciódelamembranafinsaoriginaruna vesículad’endocitosi,queposteriormentalliberaràelscomplexoshormona-receptoral’interiordelacèl·lula.
Leshormoneslipídiquesilatiroxinatravessenlamembranacel·lular iformenelcomplexhormona-receptorenelcitosol.Aquestcomplex penetraenelnucli,onintervéenlatranscripciódel’ADNaARNm. L’ARNmsurtdelnucliidirigeixlasíntesideproteïnes,algunesdeles qualstindran,perexemple,unaaccióenzimàticaqueestradueixen
accionsmetabòliquesconcretes.L’acciód’aquesteshormonesésdeduradarelativamentllarga(horesodies),isovintafectaelmetabolismei ladiferenciaciócel·lular.
Elsistemaendocríésunsistemaintegratmoltcomplexilasecreció deleshormonesestàreguladapelsmecanismessegüents:
–Regulacióperaltreshormones.Éselcasdeleshormonesla secreciódelesqualsdepèndelasecreciód’altreshormonesperpart delahipòfisi,comaralaTSH,hormonaestimulantdelatiroide.
–Regulacióperlaconcentraciód’hormonesalasang (feedback oretroacció).Laconcentraciód’unahormonaalasangéselquedeterminal’accióestimulantdel’hipotàlem.Perexemple,unbaixcontingutdetiroxinaalasangdeterminaràquel’hipotàlemsecretielfactor alliberadorespecífic(TSH.RH).AquestestimularàlasecreciódeTSH (hormonaestimulantdelatiroide)alahipòfisi,afavorintaixílasecreciódelatiroxinaperpartdelatiroide.
–Regulacióperlaconcentraciódemetabòlitsalasang.Estractatambéd’unmecanismede feedback.Encondicionsnormals,elplasmasanguinihadetenirunadeterminadaquantitatdeglucosa.Siaquestaconcentraciósuperaelsvalorsnormals,elpàncreesaugmentalasecreciód’insulina,hormonahipoglucemiantqueactivalasíntesideglicogen enelfetgeapartirdel’excésdeglucosa.
–Regulacióperestimulaciónerviosa .Éselcas,perexemple, delasecreciódel’adrenalinailanoradrenalinaperpartdelesglàndulessuprarenalsacausad’unafortaemoció,desituacionsd’alerta,etc.
Regulacióhormonal perestimulaciónerviosa
Quanelsòrgansdelssentitsinformenelcervelld’unasituaciód’alertaodeperill,lahipòfisiestimulalesglàndulessuprarenalsperquè secretinadrenalina,hormonaque indueixelscanviscorporalssegüents:
–Dilataciódelespupil·lesiaugmentdelcampvisual.
–Contracciódelscapil·larsdela pellperquèelsmúsculsdisposin deméssang.
–Augmentdelritmecardíacper proporcionarméssangalsmúsculs.
–Augmentdelritmerespiratori pertransportarmésoxigen.
–Preparaciódelesfibresmuscularsperrealitzarmovimentsbruscos.
–Alliberamentdesucresilípids perpartdelfetge,elsqualspassen alasangpertald’abastarles cèl·lulesmusculars.
Quanlatiroidesecretaunaquantitatexcessivad’hormonestiroidees,esparla,entermesmèdics,d’hipertiroïdisme,queprovocaagitacióinerviosisme,unaacceleraciódelritmecardíaci,engeneral, unaugmentgeneraldelmetabolisme.L’hipotiroïdisme esprodueix quanlesquantitatsd’hormonessecretadesperlatiroidesóninsuficients.Enaquestcas,elssímptomessóncansamentgeneral,hipersensibilitatalatemperaturaidisminuciógeneraldelmetabolisme. Elgollconsisteixenunahipertròfia(unaugmentmoltgran)dela tiroide,causadaperunaingestadeficientdeiode,elementquímic absolutamentnecessariperalfuncionamentcorrectedelaglàndula.
Secciósagitaldel’encèfalhumàamb l’hipotàlemilahipòfisi(vegeul’esquema desota).
Lacoordinacióilaregulaciódelsistemaendocrídepenendel’hipotàlem idelaglàndulaanomenada hipòfisi,duesestructuressituades alabasedelcervell.
Comelcervelldelqualformapart,l’hipotàlemestàformatper matèriagrisa,ésadir,percossosdeneurones,algunesdelesquals secretenhormones(neurohormones).
Lamajorpartdeleshormoneshipotalàmiquesregulenl’activitatde lahipòfisi,totexercintunaaccióestimuladoraiinhibidoradelasecreciód’unadeterminadahormonahipofisiària,d’acordamblesnecessitatsdecadamoment.
Lahipòfisi(glàndulapituïtària)estrobaalabasedelcervell,recolzadadamuntunapetitacavitatdel’osesfenoide.
Lapartanteriord’aquestaglàndula(adenohipòfisi)ésformadaper cèl·lulesd’epiteliglandular,comlesaltresglàndulesendocrines,mentrequelapartposterior(neurohipòfisi)ésformadamajoritàriament perlesterminacionsdelesneurones,elscossosdelesqualsconstitueixenl’hipotàlem.
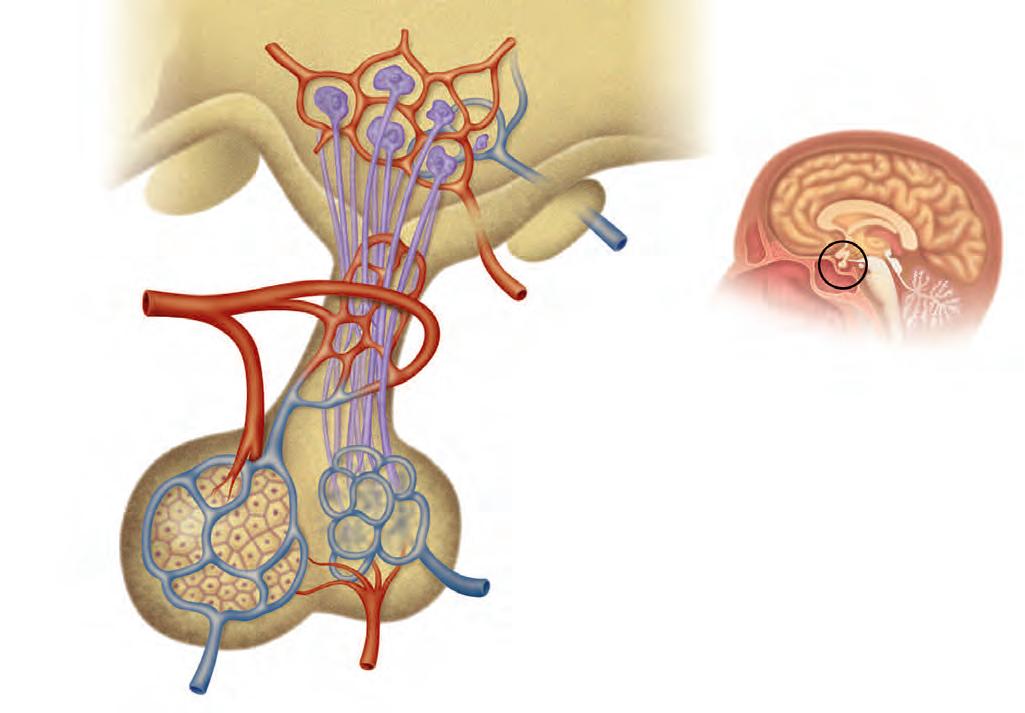
Cèl·lules neurosecretores
Sistemaportal hipotalamicohipofisiari
Capil·lars
Capil·lars
Lòbulposterior delahipòfisi
Lòbulanterior delahipòfisi
Artèriahipofisiària posterior
• Factorsalliberadors (RH).Estimulenlasecreciód’hormonesperpart delahipòfisi.Perexemple:
–GH.RH,factoralliberadordel’hormonasomatotropina(STH)o hormonadelcreixement(GH).
• Factorsinhibidors (RIH).Inhibeixenlasecreciód’hormonesperpart delahipòfisi.Perexemple:
–GH.RIH,factorinhibidordel’hormonasomatotropina(STH)o hormonadelcreixement(GH).
–Hormonaantidiürètica(ADH)ovasopressina,ques’emmagatzema alaneurohipòfisi.
–Oxitocina,ques’emmagatzemaalaneurohipòfisi.
• Adenohipòfisi
–Hormonaestimulantdelatiroide(TSH).
Activalasecrecióhormonaldelatiroide.
–Hormonadelcreixement(GH)osomatotropina(STH).
Actuasobretotl’organismeafavorintlabiosíntesiol’anabolismei laformaciódeteixits(ossos,músculs,etc.).
–Prolactina(PRL).
Activalasecreciódelletenlesglàndulesmamàries.
–Gonadotropines(nomgenèricdeleshormonesqueactuensobre lesglàndulessexuals).
–L’hormonaestimulantdelfol·licleovàric(FSH)activalaformació delfol·licleovàricenlesfemellesil’espermatogènesienels mascles.
–L’hormonaluteïnitzant(LH)activalatransformaciódelfol·licle ovàricenelcoslutiilasecreciódeleshormonessexuals femeninesomasculines.
–Adrenocorticotròpica(ACTH).
Estimulalasecreciód’hormonesenelcòrtexsuprarenal.
• Neurohipòfisi –Oxitocina.
Estimulalacontracciódelsmúsculsdel’úterenelpartila producciódelletatravésdelesglàndulesmamàries.
–Hormonaantidiürètica(ADHovasopressina).
Tendeixareduirelvolumd’orinaiamantenirdinsd’uns determinatslímitsalgunescaracterístiquesquímiquesdelasang. Actuacomavasoconstrictordelsvasossanguinisicoma hipertensor.
El sistemahipotàlem-hipòfisi éslapeça principalenlaregulaciódelsistemaendocríienlacoordinaciónerviosadela secreciód’hormones.
L’oxitocinaestimulalescontraccions interineseneltranscursdelpart.
Epífisi
Tiroide
Tim
Hipòfisi Paratiroides
Suprarenal Pàncrees
Placenta
Ronyó
Tubdigestiu
3.1.Lesprincipalsglàndulesendocrinesdel coshumàileshormonesquesecreten
Placenta
Òrganfemeníques’originadurantl’embaràsperintercanviarsubstànciesentreelfetusilamare.
– Gonadotropinacoriònica.Impedeixlaprossecució delciclemenstrualipreparal’úterperalaimplantació del’embrió.
– Lactogen.Activalasecreciódelalletalesglàndulesmamàries.
– Estrògensiandrògens.
Tim
Òrganlimfoidedelsistemaimmunològic,situatalapart centraldeltòrax,queajudaaformarimadurarlimfòcits.Éspropidelsinfantsiarribaalamàximamidai activitatenlapubertat,apartirdelaqualesvaatrofiant.
– Timosina.Estimulalarespostaimmunitàriaperpart delsistemalimfàtic.
Ovari
– Estrògens,comaral’estradiol.Estimulenlamaduracióielfuncionamentdelsòrganssexualsfemenins.Manteniment delscaràcterssexualssecundarisfemenins.
– Progestàgens ,comarala progesterona.Mantenenelsprocessos fisiològicsdel’embaràs,totdeixantensuspenslarepeticiódelcicle menstrual.Desenvolupamentdelsistemaalveolardelesglàndules mamàries.
Estrobaalazonaanteriordelcoll,sotalalaringe,adossadaalatràquea.Elseufuncionamentrequereixl’aportaciódeiode.
– Triiodotironina.Activaelmetabolismecel·lularenergèticilasíntesideproteïnes.
– Tiroxina.Incrementaelmetabolismebasalafavorintl’oxidaciódels glúcids,laproducciódecaloril’acciódemoltsenzims.Accelerael ritmecardíaciincremental’activitatneuromuscular.Influeixenelcreixement,lamaduracióiladiferenciaciódelamajorpartdelsteixits.
– Calcitonina.Regulaelmetabolismedelcalciidelfòsfor.Afavoreixl’ossificació.
Tubdigestiu
– Gastrina .Secretadaperl’estómac,estimulalasecreciódeHCl gàstric.
– Secretina.Secretadapelduodè,estimulalasecreciópancreàtica.
Epífisi(glàndulapineal)
– Melatonina .Intervéenlaregulaciódelritmenaturaldelavidadiària,especialmentenlaregulaciódel son.
Paratiroides
Sónquatreglàndulespetitesqueestrobenalapart posteriordelatiroide.Secretenla parathormona ,la qualintervéenlaregulaciódelmetabolismedelcalci idelfòsforenl’organisme.
Testicle –
Andrògens.Elmésimportantéslatestosterona. Estimulenlamaduracióielfuncionamentdelsòrgans sexualsmasculins.
Ronyó
– Renina .Ajudaacontrolarlapressiósanguínia.
– Eritropoetina .Intervéenlaproducciódeglòbuls vermells.
Glàndulessuprarenals(glàndulesadrenals)
Estrobensobreelsronyonsicadaunaestàformada perduesparts:
1)Còrtex
•Glucocorticoides: cortisol i cortisona.Regulenelmetabolisme delsglúcids,delslípidsidelesproteïnes.Accióantiinflamatòria.
•Mineralcorticoides: aldosterona i corticosterona.Regulenel contingutd’aiguadel’organismeil’equilibrientreelsionssodi ipotassi.
•Hormonessexuals.Interveneneneldesenvolupamentimantenimentdelscaràcterssexualssecundaris.
2)Medul·la
• Adrenalina (epinefrina).Regulalesreaccionsd’emergència del’organismeenfrontdelsperills:augmentaelritmecardíacirespiratori,incrementalaglicogenòlisialfetgeialsmúsculs.Algunesneuronestambélasecretencomaneurotransmissor.
• Noradrenalina.Col·laboraamantenirlapressiósanguíniairegulalesreaccionsd’estrès.Ésunimportantneurotransmissor.
Pàncrees
Estrobaalapartesquerradelacavitatabdominaliformapartdel tubdigestiu.Defet,ésunaglànduladoble:exocrina(secretaenzims digestius)iendocrina(secretahormones).
Regulaciódelcontingutdeglucosaenel plasmasanguini(glucèmia). Estractad’untipusderegulaciódela secrecióhormonalperconcentracióde metabòlitsalasang.Télloc principalmentalfetgeihiintervenenla insulinaielglucagó,dueshormones pancreàtiques.
Hiperglucèmia
–
Insulina .Fonamentalenelmetabolismedelaglucosa:disminueixlaglucèmia(nivelldeglucosaalasang)itransformalaglucosaenglicogenenelfetgeienelsmúsculs.Estimulalaformació d’àcidsgrassosapartirdelaglucosa.Afavoreixlasíntesidelesproteïnes.
– Glucagó.D’accióoposadaicomplementàriaalainsulina,augmentalaglucèmiaiafavoreixlaglicogenòlisialfetge.Facilitalahidròlisidelípidsenelteixitadipós.
Emocions
Altnivelldeglucosaenelplasmasanguiniacausa d’unaabundantingestiódeglúcids
Insulina
Centresnerviosos
Pàncrees
Hipoglucèmia
Factorsexterns
Regulació nerviosa
Nervis
Medul·la suprarenal
Escorça suprarenal
Hipòfisi
ACTHHormona d el cr ei x e m e n t Corti sol Ad renali na Glucagó
Glucèmianormal Hiperglucèmia
Fetge
GlucòlisiGluconeogènesi
Músculs
Utilitzaciódelag lucosa
Hipoglucèmia
Regulació hormonal
Glucosa Aliments
Autoregulació
Baixnivelldeglucosaenelplasmasanguini
Vassanguini
Altnivelldeglucosaenelplasma
Vassanguini Glucosa
Lipoproteïnesdelplasma Cèl·lulahepàtica
Glucosa-6-fosfat
Glicogen (emmagatzemat) Àcids grassos
Vassanguini
Insulina (delpàncrees) (Acció hipoglucemiant)
Cèl·lulahepàtica
Àcidsgrassos
Obtenció d’energia
Alescèl·lules
Teixitadipós
Lípidsdelplasma
Glicogen
Glucosa-6-fosfat
Glucosa
Vassanguini
Alescèl·lules: obtenciód’energia
Glucagó (delpàncrees) (Acció hiperglucemiant)
4.1. Dequinamaneraespodencomunicarduescèl·lulesproperes? Quinssónelssistemesdecomunicacióadistànciadelescèl·lules?
4.2. Explicacoméspossiblequeunmateixsenyalrebutperuna mateixaproteïnareceptoraoriginienalgunscasosunarespostaalcap d’unssegonsienaltrescasosalcapd’uneshores.
4.3. Copiaaquesttexticompleta’nelsespaisbuitsamblesparaules següents: metabòlics,cèl·lules,hipotàlem,orgàniques,regulació,sang, creixement,neurohormones,endocrines,endocrinologia,reproducció i hipòfisi.
Leshormonessónsubstànciesquímiques…secretadesperles glàndules…,quesóntransportadesperla…finsalsteixitsiales …,onactuen.L’…estudialesglànduleshormonals,leshormones quesecretenielsefectesqueaquestestenensobrel’organisme.
Leshormonesintervenenenla…denombrososprocessos…, enel…del’organisme,enelcontroldela…,etc.
Elfuncionamentdelsistemaendocríestàcontrolatperl’…,part delcervellquesecretales…queestimulenelfuncionamentdela ….Aquesta,alseutorn,controlaelfuncionamentdelesaltresglàndulesendocrines.
4.4. Escriuunallistadelesglàndulesendocrinesiexplicaonestan situadesiquineshormonessecreten.
4.5. Copialesfrasessegüentsiindicasisóncertesofalses:
a)Lainsulinaéslaprincipalhormonasecretadaperlaglàndula tiroide.
b)Latestosteronaésunahormonasexualsecretadapelstesticles.
c)Elcreixementdelcosestàcontrolat,enpart,perl’hormona tiroxina.
d)Laquantitatdeglucosacontingudaalasangestàcontrolada perlainsulinaielglucagó.
e)Leshormonessexualsmasculiness’anomenen estrògens
f)Lesglàndulessuprarenalsestrobendamuntelsronyons.
g)L’adrenalinaésunahormonaqueestimulalesreaccionsenfront delsperillsexteriors.
h)Ladiabetisésunamalaltiadegudaalamancad’insulinaoa unainsuficientproducciód’aquestahormonapelpàncrees.
i)Laprogesteronaésfonamentaleneldesenvolupamentdel’embaràs.
j)Elsandrògenssónhormonesdecomposiciópeptídica.
k)Eltimésunòrganlimfoideimportantenelsistemaimmunològic.
l)Eliodeésnecessariperalcorrectefuncionamentdelahipòfisi.
La diabetis és,sensdubte,undels trastornsmetabòlicsihormonals mésfreqüentsiconeguts.La diabetismellitus ésunaalteraciócrònicadelmetabolismedelsglúcids queesmanifestaperunaugment delsnivellsdeglucosaalasang (hiperglucèmia),perl’aparicióde glucosaal’orina(glucosúria)iper laproducciódenotablesquantitatsd’orina.
Esdistingueixendostipusprincipalsde diabetismellitus: –TipusI(abansanomenada Insulinodependent i diabetisjuvenil) queescaracteritzaperunaràpida destrucciódelescèl·lules pancreàtiquesproductores d’insulina(cel·lulesbetadelsillots deLangerhans)enunprocés d’autoimmunitat.Lamalaltia apareixdesobte,majoritàriament enl’edatinfantilijuvenil,i requereixl’aportaciód’insulina exògena.
Enunnombresignificatiudecasos elfactorhereditariogenèticés clar.
–TipusII:Éslavarietatmés freqüent:representapropdel 80 %delscasosquees diagnostiquen.Enel desenvolupamentd’aquesta varietatdelamalaltiaes superposendosprocessos.En primerlloc,unadisminuciólenta delaproducciód’insulinaperuna alteracióorgànicadelescèl·lules pancreàtiques,senselaintervenció deprocessosd’autoimmunitat.En segonlloc,esprodueix l’anomenada resistènciainsulínica, procéspelqualdisminueix l’eficàciadelainsulinaenla disminuciódelnivelldeglucèmia. Sesoldiagnosticaral’edatadulta iambfreqüènciaapareixassociada al’obesitat(enespeciala l’augmentnotabledelgreix abdominal)ialsedentarisme.
Botonsterminals
4.6. Responalespreguntessegüents:
a)Aquingrupquímicd’hormonespertanylatiroxina?
b)Quinaglàndulasecretaaquestahormona?
c)Coms’estimulalasecreciódelatiroxina?
d)Onestrobenelsreceptorssobreelsqualsactuaaquestahormona?
4.7. Explicabreumentquèéseltimiambquinaltresistemad’òrgans estàrelacionat.
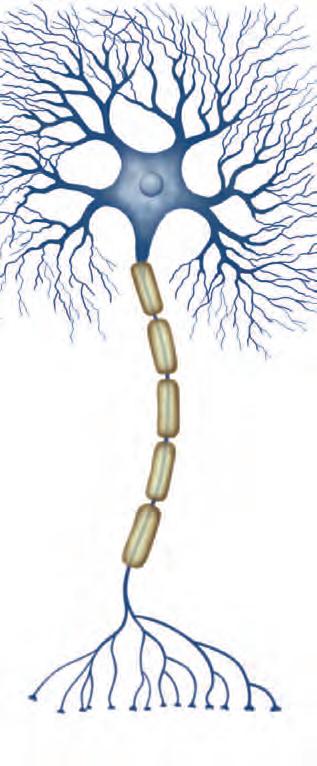
Estructurad’unaneurona.
La neurona éslaprincipalcèl·luladelsistemanerviós.S’hidistingeixenlesestructuressegüents:
–El coscel·lular,queincloulamajorpartdelcitoplasmaielnucli. –Les dendrites,prolongacionsdelcoscel·lularcurtesiramificades querebenlainformaciód’altrescèl·lulesilatransmetenalcoscel·lular. Sónprolongacionscentrípetes.
–L’axó,prolongacióprincipal,avegadesdebastantscentímetresde llarg,quealseuextrempresentapetitesramificacionsquelipermeten establirconnexionsambmoltesaltresneuronesdemanerasimultània. L’axóéslaviadesortidadelainformaciódelaneurona.Sovint,l’axóestàenvoltatperuna beinademielina (odeSchwann).
Caldestacartrescaracterístiquesdelafisiologiadelesneurones:són cèl·lulesquenoesdivideixeni,pertant,lasevadestruccióésirreversible;sóncèl·lulesexcitablesquetransformenelsestímulsolainformaciórebudaenimpulsosnerviososdetipuselèctric;s’integrenencircuitsenelsqualsl’axód’unaneuronaconnectaambladendritad’unaaltraneuronaoambunacèl·lulaefectora(fibramuscular,cèl·lula glandular).
4.1.Lasinapsiielsneurotransmissors
La sinapsi éslazonadeconnexióentreneurones.L’estudialmicroscopidelteixitnervióshapermèscomprovarqueenlessinapsisno hiha«contacte»físicentrelesneuronesiquelacomunicacióentre aquestesesprodueixmitjançantlasecreciódesubstànciesquímiques,anomenades neurotransmissors ,quesintetitzenlesmateixes neurones.
Unasinapsiinclouelselementssegüents:
–la membranapresinàptica del’axó d’unaneurona,ambabundantsmitocondrisivesículesquecontenenelsneurotransmissors;
–la fossasinàptica,espaidepocs nanòmetresd’ampladaqueseparalesdues neuronesensinapsi;
–la membranapostsinàptica d’una dendritaouncosneuronald’unaneurona,d’unafibramuscularod’unacèl·lula glandular.Alasevasuperfíciepresenta receptorsdelsneurotransmissors.
Vesículasinàpticaamb neurotransmissor
Membrana presinàptica
Membrana postsinàptica
L’arribadadel’impulsnerviósalamembranapresinàpticafaquelesvesículesque contenenelneurotransmissoresfusionin ambaquestamembranaialliberinelneurotransmissor,elqualesdifonperlafossasinàpticai,finalment,s’uneixambels receptorsespecíficsdelamembranapostsinàptica,iprovocacanvisqueafectenles propietatselèctriquesd’aquestamembrana.Launióneurotransmissor-receptorfunciona, grossomodo,comunsistemaclaupany(elmissatgerquímicobétéunaformacomplementàriaaladelamolèculadelreceptor,obéhitéafinitats elèctriques).Elneurotransmissordeterminacanvisenlesproteïnesreceptoresdelamebranapostsinàpticaqueindueixenlapropagaciódel’impulsnerviós(devegades,prèviaal’activaciód’unmissatgerquímicintracel·lular).Arabé,quanelneurotransmissorhacausatelseuefecteés inactivatimmediatamentperunprocésanomenat derecaptació (altramentesproduiriaunefecterepetitindesitjat,comsidesprésd’haver premuteltimbred’unaportanoretiréssimelditdelpolsador).
• Aminoàcids: glicina,glutamat,aspartat.
Estructurad’unasinapsi.
Sistemadeclau-panyqueexplicael funcionamentdelaunió neurotransmissor-receptor.
• Derivatsd’aminoàcids: dopamina,adrenalina,noradrenalina,serotonina,histamina,àcidg-aminobutíric(GABA).
• Derivatsdelmetabolismedelaglucosa: acetilcolina.
• Neuropèptids:
–Neuropèptidsdelahipòfisi:corticotropina,etc.
–Neuropèptidsquesónhormoneshipotalàmiques:factorsalliberadorsiinhibidorssecretatsperl’hipotàlem.
–Neuropèptidsquesónhormonescirculantsalasang:angiotensina,calcitonina,glucagó,insulina,etc.
–Pèptidsopiacisdelcervell:dinorfina,endorfina,encefalina.
–Altresneuropèptids:neurotensina,bradicinina,etc.
Enelsistemanerviósdelsanimals superiors,elscossosdelesneurones formenlasubstànciagrisa(queen aquesttalldemedul·laespinalesveu tenyidadevermell),mentrequeels axons,empaquetatsenfeixos,formenla substànciablanca(tenyidadegris).
Toteslescèl·lulesitotselsteixits,òrgansiorganismesenvelleixen.Aquest envellimentsemblaprogramat,ésadir,lavidamitjanadelescèl·lulesestariapredeterminada.Enlamesuraquelesneuronesnoesdivideixen,els òrgansdelsistemanerviós,comaraelcervell,sónmoltsensiblesal’envelliment.Malgratqueelcervellhumàperdmilersdeneuronescadadia,aquestapèrduanotéunaexcessivaincidènciafuncional,jaqueesprodueixde maneraaleatòria,ésadir,afectaneuronesal’atzar.Únicamentladesapariciómassivadeneuronesacabaproduintalteracionsfuncionalsimportants. Quanladestrucciódelesneuronesdelcervellnoesprodueixal’atzar,sinó queafectaunapartd’unconjuntdeneurones,aleshoresapareixentrastorns importants.Duesgransfamíliesdemalaltiesdegenerativesdelcervellestan lligadesaladestrucciónoaleatòriadeneurones:lessíndromesdeParkinson id’Alzheimer,característiquesdelademènciasenil.LamalaltiadeParkinsonconsisteixenunaalteraciódelacoordinaciódelsmovimentsmusculars quenormalmentesportenatermedemaneraautomàtica.Lacausadela malaltiaésladegeneraciód’unpetitgrupdeneurones(unsquantsmilers), situadesenelsnuclisgrisosdelabasedelcervell.Lamalaltiad’Alzheimer consisteixenundeterioramentprogressiuiirreversibledecertesfuncionscerebrals,comaralamemòria,lacapacitatd’orientació,etc.Enaquestcas,les
a)SantiagoRamónyCajal.
b)Microfotografiaelectrònica(enfals color)deneuronespiramidals(enverd, lescèl·lulesauxiliatsdelaglia)(500x).
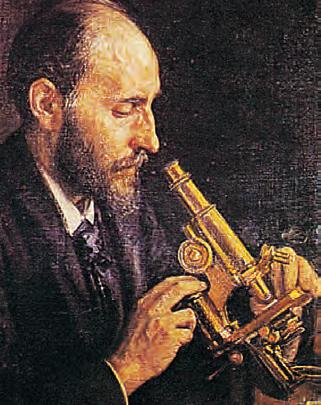
Metgearagonès(1852-1934),foucatedràticd’anatomiaalaUniversitatde València(1883)id’histologiaalesuniversitatsdeBarcelona(1887)i Madrid(1892).Vadesenvoluparunatascafonamentalenl’estudidelteixit nerviósalmicroscopiòptic,aplicantnovestècniquesdetinció.Lessevesobservacionsielsseusdibuixosencaraesconsiderenmodèlicsdesdelpuntdevistacientífic.Vadefensar lateoriadelatransmissió del’impulsnerviósper contigüitatentrecèl·lules independents,coneguda comateoriadelaneurona.L’any1906vacompartirelpremiNobelde FisiologiaiMedicina ambCamilloGolgi,pels seustreballssobrel’estructuradelsistemanerviósi elfuncionamentdeles neurones.
4.2.L’impulsnerviósilasevatransmissió
L’origenilatransmissiódel’impulsnervióssóndegutsacanvisenles propietatselèctriquesdelamembranaplasmàtica.
Enunaneuronaenrepòs,lamembranaseparadosmedis(citosoli mediextracel·lular)ambunaconcentraciódesiguald’ionsNa+,K+ i Cl–.Lacaraexternadelamembranapresentaunlleugerpredomini d’ionspositius,mentrequelacarainternaéslleugeramentnegativa. S’originaaixíunapetitadiferènciadepotencialelèctricentrelesdues caresdelamembrana,anomenat potencialderepòs o potencialde membrana .Esdiuquelamembranaestà polaritzada.
Enalgunescèl·lules,ladiferènciadepotencialelèctricpotvariar temporalmentcomaconseqüènciad’unestímulconcret.S’anomenen cèl·lulesexcitables isónles fibresmusculars iles neurones,capacesdegenerarunimpulsnerviós(uncorrentelèctric),ésadir,un canvienelpotencialdelamembrana.Defet,elsòrgansdelssentits oreceptorssensorialscontenencèl·lulesquetransformenestímulsespecíficsenimpulsosnerviosos.Així,elsbastonsiconsdelaretinatradueixenenimpulsosnerviososlallumquecapten,ilescèl·lulesciliadesdel’oïdainternahofanambelsoqueelsarriba.
Quans’estimulaunaxóesprodueix,enelpuntexcitat,unaugmentdelapermeabilitatdelamembranaalsions:elsionssodipenetrenmassivamentenl’axó,mentrequeelsionspotassisurtenper difusió.
S’anomena potenciald’acció elcanviproduïtenelpotencialde repòsdelamembranad’unaxócomaconseqüènciadel’arribadad’un estímul.Elpotenciald’accióoriginal’oberturadels canalsdesodi i l’entradasobtadad’ionsNa+ alacèl·lula.Enelpuntd’oberturadels canals,lacaraexternadelamembranaquedaràambuncertacàrrega negativa,mentrequel’interiorcel·lularseràméspositiu.Esdiuque s’haproduïtla despolarització delamembrana.
Atravésdelamembrana,esprodueixun fluxcontinud’ions,enelqualles proteïnesdemembranadesenvolupenun paperessencial.
Eltransportpassiud’ionsesprodueixa travésdeles proteïnescanal, específiquesperacadaespècied’ions. Aquesttransportesprodueixafavordel gradientelèctricideconcentraciód’ions: elsionsNa+ tendeixenapenetrarenel citosol,mentrequeelsionsK+ tendeixen asortir-ne.
Eltransportactiuesprodueixcontrael gradientelèctricideconcentraciód’ions, inecessital’aportaciód’energia.Aquest transport,elportenatermelabombade sodiidepotassi,ambintervenciódels enzimsATPasesqueconsumeixenl’ATP.
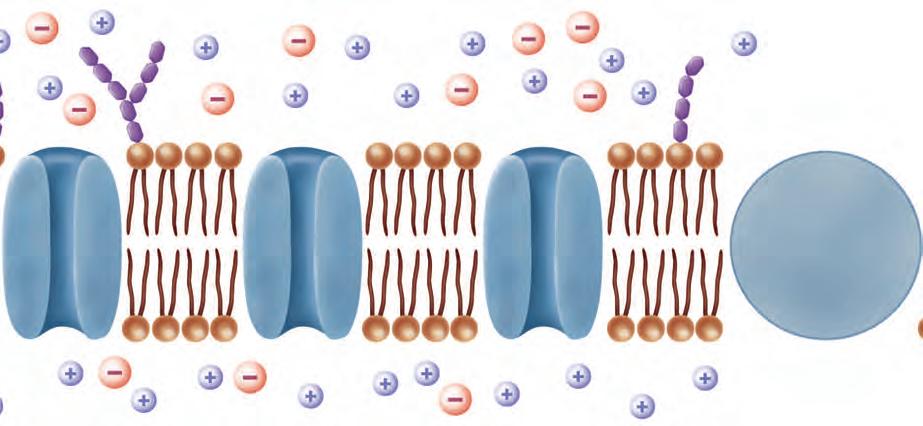
Totselsimpulsosdetoteslesneurones tenenlamateixaduradaielmateix canvidevoltatge(a).Commésintensés l’estímul,mésimpulsosesgenerenper unitatdetemps,talcommostrenels gràfics(b),elsqualsmesurenelsimpulsos nerviososemesosperunaneurona sensorial(tàctil)delapelldelgatquan lapelléspressionadaambforces diferents.
Elpotenciald’accióespropagaalllargde l’axócomunatacad’oli,enformad’onade despolarització,peroberturadelscanalsde sodipropers.
Elpotenciald’accióhad’arribarauncert nivell, llindard’excitació,perquèesprodueixiladespolarització.Sisesuperaaquestllindar,s’originasempreunpotenciald’acciódela mateixaamplitud.Aquestaconstànciaenl’aparicióol’absènciadelpotenciald’accióes coneixambelnomde lleideltotores de l’excitació.
Desprésdeladespolarització,elscanalsde sodiobertsestornenatancar(alcapd’uno dosmil·lisegons),alhoraques’obrenelscanals depotassiambunafunciósimilarrespecteals ionsK+,amblaqualcosaesrestableixbenaviat lasituacióprèviaalaformaciódelpotencial d’accióilarepolaritzaciódelamembrana.
El reflex ésl’acció,involuntàriaiautomàtica,méselementaldelsistemanerviós.Ensónbonsexempleselreflexrotulià(extensiódelacamaquanescolpejaeltendódelmúsculextensordelacama)oelreflexpupil·lar(tancamentde lapupil·laperacciódelallum).
Unprocéstan simplecomara caminar,apart delaintervenció d’altres estructures nervioses, implica,ala vegada,la coordinació simultàniade nombrosos reflexosales duesextremitats ambreflexos activadorsi inhibidorsde diversosmúsculs.
Fibresmuscularsambles terminacionsneuronals
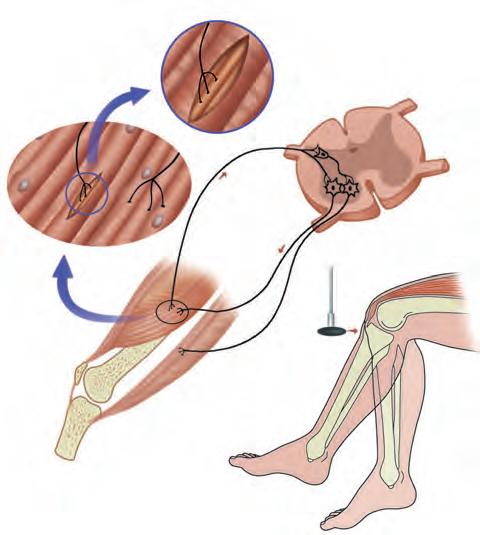
Hiintervenenelselementssegüents:
–Unreceptorquecaptaunsenyaliel transformaenimpulsnerviós.
–Unaviasensitivaonervisensitiuque condueixl’impulscapauncentrenerviós.
–Uncentrereflex(medul·la,etc.)que repl’impulsielaboraunarespostaenforma d’impulsnervióstransmèsperunavia motora.
–Unaviamotoraonervimotorque condueixl’impulsnerviós.
–Unòrganefectorqueexecutalarespostaelaborada.
Un reflexcondicionat ésaquellque s’adquireixperacumulaciód’experiències. Mitjançantlareiteraciód’undeterminat estímul,associataunarespostasatisfactòria, esdesencadenaunarespostaautomàtica cadavegadaqueesrepeteixl’estímul.
4.3.Lasinapsineuromuscular.
Lacontracciómuscular
Lamajorpartdelesactivitatsdelsanimalsesbasen enlacontracciódelsmúsculs,formatspercèl·lules anomenades fibresmusculars.
Lafibramuscularescontraucomaconseqüènciadel’arribadad’unimpulsnerviósatravésde l’axódelaneuronaquefasinapsiambella.Lasinapsineuromusculars’anomena placamotora ielneurotransmissorquehiactuaésl’acetilcolina.
Lafibramusculard’unmúsculesquelèticésllarga,cilíndricaipolinucleada,ambuncitoplasma (sarcoplasma)formatpernombroses miofibril·les, ésadir,feixosdefilamentsdeproteïnescontràctils.Cadamiofibril·laestàformadapermilersde sarcòmers (unitatsdecontracciómuscular)constituïtsperdostipusdefilaments:unsdegruixuts de miosina iunsaltresdeprimsd’actina,de troponina ide tropomiosina
Lacontracciómusculars’iniciaquanunimpulsnervióstransmetun potenciald’accióalamembrana(sarcolemma )id’aquestaalesvesículesdelreticleendoplasmàtic,quealliberaranionsCa2+ alsarcoplasma.Elsionscalcis’uneixenalesmolèculesdetroponinadelsfilaments prims,iprovoquencanvisenlaconformaciód’aquestsfilaments,els qualsllisquendamuntelsfilamentsdemiosinaescurçantelsarcòmer. Elresultatfinaléslacontracciómuscular.EnaquestprocésesconsumeixATP.
Quancessal’estimulació delmúscul,lamembranai elreticleesrepolaritzeniels ionsCa 2+ sónbombatsactivamentcapal’interiordel reticleperacciód’unenzim, l’ ATPasadependentdel Ca 2+ o bombadecalci .Si s’esgotal’ATPdelafibra muscular,elCa 2+ noretornaalsarcoplasmainoté lloclarelaxaciómuscular. Aleshoresesprodueixenles rampes.
Cèl·lulaglial Nucli
Citoplasma
Contacted’unaxóambunafibra muscularatravésdelsbotons terminals.
Vesículad’acetilcolina
Mitocondri
Sinapsineuromuscularoplacamotora.
Citoplasmao sarcoplasma
Fibramuscular
Membranaosarcolemma
Fibresocèl·lules muscularspolinucleades
Reticle sarcoplasmàtic
Filamentsd’actina, troponinai tropomiosina
Filaments demiosina
Túbuls transversals
Moltessubstànciesestimulants(comaralesamfetamines),altresdrogues(com aralacocaïna,lanicotinaolamorfina)otòxicsdiversos(emprats,perexemple,enlafabricaciódenombrososinsecticidesid’armesquímiquesibiològiques)alterenelfuncionamentdelsistemanerviósestimulantoinhibintles sinapsis.Elconeixementdelfuncionamentdelasinapsihapermèsfabricar medicaments(antidepressius,ansiolítics,etc.)queactuensobrelessinapsis quenofuncionenbé.
Substànciesquemodifiquenlasíntesideneurotransmissorsperlesneurones Unexempledelamancad’aquestessubstàncieséslamalaltiadeParkinson,en laqualunreduïtgrupdeneuronesdegenereni,acausadelamancad’un enzim,deixendesintetitzarelneurotransmissordopamina.
Estructuradelmúsculestriat,talcom s’interpretaapartirdel’estudiatravés delmicroscopielectrònic(adalt),i músculestriatvistatravésdelmicroscopi òptic(asota).
Substànciesqueinflueixenenl’alliberamentd’unneurotransmissor
Lesamfetamines,perexemple,incrementenl’alliberamentdeneurotransmissors delgrupdel’adrenalina,amblaqualcosaprovoquenunafortaexcitacióila superaciótemporaldelasensaciódecansament.
Substànciesquemodifiquenlarecepciódeneurotransmissorsperpartdela membranapostsinàptica
Diversosverinsdeserpielcurare(veríqueutilitzavenalgunsindissud-americansperenverinarlessevesfletxes)sóninhibidorscompetitiusdel’acetilcolina, ésadir,s’uneixenalsreceptorsespecíficsd’aquestaenlessinapsisneuromusculars impedintlasevaaccióiprovocantunaparàlisigeneral.
L’accióanalgèsica(disminuciódelasensaciódedolor)dediversosderivatsde l’opi,comaralamorfinail’heroïna,ésdegudaalfetqueelcervellelsreconeix comaneurotransmissorsdelgrupdelesendorfines.Provoquenunaacciódepressivatemporaldelsistemanerviós,ambunasensaciódebenestar,absènciade dolor,disminuciódelafreqüènciacardíaca,etc.Elproblemaésqueaquestes droguescausen,entrealtresproblemes,unagrantolerànciaidependència.
Substànciesquemodifiquenlainactivaciódelsneurotransmissors
Unavegadahanfetlasevafunció,elsneurotransmissorssóndegradatsoreabsorbits.Certessubstàncies,comaralescontingudesenmoltsinsecticidesorganoclorats,sóntòxiquesperquèimpedeixenlainactivaciódelneurotransmissoracetilcolina,accióquepotprovocarungreuquadreclínic(diarrees,asfíxia,alteraciódelritmecardíac,etc.).
Lesamfetaminesilesdroguesdedisseny
Lesamfetaminessónsubstànciesquímiquessintetitzadesalcomençamentdel segle XX apartird’alcaloidesvegetalsperserutilitzadesenmedicina.Laseva administracióestimulal’activitatdel’escorçacerebralproduinteufòria,disminuciódelafatiga,augmentdel’activitatmotora,confiança,iniciativa,insomni,etc.
Elconsumcontinuatd’amfetaminesprovocaunamanifestatolerànciai dependència,iunaclarasíndromed’abstinència.
Lesamfetamines,enformade droguesdedisseny,sónlesdroguesmésconsumidesentreelsadolescents,juntamentambelsderivatsdelcànnabis,lacocaïnailesdrogueslegals(alcoholitabac).L’«èxtasi»,probablementladrogade dissenymésfamosa,vasersintetitzadal’any1914,peròaleshoresnoesvaarribaracomercialitzar.Altresdroguesmoltconegudessónl’speed,la«píndolade l’amor»(MDA),l’«eva»(MDE),etc.Acausadelafacilitatambquèespoden sintetitzar,lesdroguesdedissenyvarienconstantment,perlaqualcosaelconsumidornoconeixnilacomposició,niladosi,nilapuresad’aquestespíndoles.
Elcomerçclandestídedroguesdedissenyésespecialmentactiualvoltantde determinatslocalsnocturnsienrelacióambfenòmensmusicalsdemoda.
Elsistemanerviósfuncionagràciesals impulsosqueviatgenperlesfibresnerviosesiquepassendeneuronaaneuronaatravésdelessinapsis.Enaquesteszonesdecontacte,latransmissióde l’impulsésquímicaiesprodueixper mitjàdel’alliberamentdemolèculesque s’anomenen neurotransmissors Totelqueafectalafunciód’aquests neurotransmissorsafectaelfuncionamentdelsistemanerviós.
Les cèl·lulesnervioses sóncèl·lulesexcitablesquetransformenlainformació rebudaenimpulsosnerviososdetipus elèctric.
4.8. Copiaaquesttexticompleta’nelsespaisbuitsamblesparaules següents: connexió,neurotransmissors,comunicació,estímuls,impulsos nerviosos,contacte,divideixen,neurones,receptors i circuits
Les…sónlesprincipalscèl·lulesdelsistemanerviós.Estractade cèl·lulesquenoes…iques’integrenen….
Lasinapsiésla…entreduesneurones,quenoarribenal…físic.
Lesneuronessóncèl·lulesquetransformenels…rebutsen…de tipuselèctric.
La…entrelesneuronesesprodueixmitjançantmissatgersquímics,anomenats…,ques’uneixena…específics.
Lesdroguespsicoestimulantsactuen sobrelesneuronesencefàliquesqueusen dopaminacomaneurotransmissor, perquèfacilitenl’alliberamentperpartde laneuronapresinàptica(aladreta).
4.9. Explicaquèéslamatèriagrisaiquèéslamatèriablancaicom estandistribuïdesenelcervellienlamedul·laespinal.
4.10. Fesunesquemad’unasinapsiiassenyala’nlesparts.
4.11. Defineixiexplicalesdiferènciesexistentsentre dendrita i axó.
4.12. Consultaundiccionariounaenciclopèdiaidefineix neurologia i psiquiatria
4.13. Quèsónlesproteïnescanal?Onestroben?Quinafunció tenen?
4.14. Explicalafrasesegüent:«Lamembranaplasmàticaestàpolaritzada.»
4.15. Copiacadafraseoconceptedelprimergrupirelaciona’lamb elcorresponentdelsegongrup.
Primergrup: sinapsineuromotora,sarcolemma,proteïnacontràctil, sarcòmer,bombadesodi,sarcoplasma.
Segongrup: unitatdecontracciódelafibramuscular,transportactiu, membranadelafibramuscular,mitoplasmadelafibramuscular, miosina,placamotora.
4.16. Defineix acetilcolina iindicaenquintipusdesinapsiintervé aquestneurotransmissor.Explicaquinefecteprovocaelveríd’algunes serpsenl’acciódelsreceptorsdel’acetilcolina.
4.17. Quinsnomsrebenelcitoplasmailamembranadelafibra muscular?Indicaalgunacaracterísticadistintivad’aquesttipusde cèl·lula.
Disseminatpertotelcosiformatperdiversostipusdecèl·lulesiper unagranvarietatdemolècules(els anticossos),el sistemaimmunològic ensdefineixiensprotegeix.Ensdefineixperquèéscapaçde diferenciarelqueéspropioalièal’organisme,iensprotegeixperquè intentadestruirtotallòquereconeixcomaestrany:els antígens,com aagentspatògens,cèl·lulesd’altresorganismes,substànciesquímiques diverses,etc.Lescèl·lulesessencialsdelsistemaimmunològicsónels limfòcits.Defet,elsistemaimmunològicconstitueixlatercerabarreradel’organisme,queescaracteritzaperlasevaespecificitat.Lesaltres duesbarreressónlapellilarespostacel·lularinespecífica.
Elsistemaimmunològicdisposad’una memòria característicaque lipermetreaccionardemaneraràpidaieficaçcontraunantigenamb elqualjahaestatencontacte.Lamemòriaimmunològicaesvaadquirintalllargdelavida,peròunapartés«ancestral»iéstransmesagenèticamentpelspares.
La immunologia estudialanaturalesadelesmalaltiesinfeccioses, elsnousenfocamentseneltractamentdelcàncerienlesmalalties causadesperunamalarespostaimmunitària,idónabasescientífiques percomprendrel’organitzacióquímicadelséssersvius.
Elsistemaimmunològicésel conjuntd’òrgansiestructurescorporalsqueintervenen enla immunitat,ésadir,en lacapacitatquel’organisme téperoposar-sedemanera específicaamicroorganismes, cèl·lulesomolèculesalienes (els antígens )mitjançant cèl·lulespròpiesol’elaboraciódemolèculesespecífiques (els anticossos).Demanera mésrestringida,laimmunitatesconsideralainvulnerabilitataunamalaltiainfecciosa.
Lescèl·lulesimplicadesen laimmunitats’originenala medul·laòssiavermella,circulenperlasangilalimfa, imadurenis’emmagatzemen
Elsglòbulsblancs,queenaquesta fotografiaapareixenacoloritsenverd, sónlescèl·lulesencarregadesdela defensadel’organisme.
enelòrganslimfoides.Alamedul·laòssiavermellaialtim(òrgans limfoidesprimaris),lescèl·lulesimmunitàriesadquireixenla immunocompetència ocapacitatdedistingirentrelesmolèculespròpies, quetoleren,ilesalienes,quetractend’eliminar.
Lescèl·lulesimmunitàriesnoestanconfinadesenunsolpuntdel cos,niestanagrupadesperformaròrgansconcrets,sinóquesónmòbils, senselligamsfixosambaltrescèl·lules.
La memòriaimmunològica permetunarespostamésràpidaieficientquanunantigenpenetradenoual’organisme.Aquestamemòriaéslabasedela vacunació (acciópreventivaqueafavoreixlaproducciód’anticossosespecífics).
Adenoide
Amígdala
Conductelimfàticdret
Tim
Intestígros
Medul·laòssia
Conductetoràcic
Venasubclàviaesquerra
Ganglislimfàtics
Plaquesde Peyer Melsa
Intestíprim
Vasoslimfàticstissulars
Òrgansiteixitsdelsistemaimmunològic.Lamedul·laòssiavermellaieltim constitueixenelsòrganslimfoidesprimaris.Larestasónelsòrganslimfoidessecundaris.
Comqualsevolòrganoaparell,elsistemaimmunològicpotpatiralteracionsen elseufuncionamentqueesmanifestenenundefecteounaexageraciódelesreaccionsimmunitàriesconsideradesnormals.Aquestesalteracionspodentenircausesmoltdiverses:genètiques,fisiològiques,perinfecciódemicroorganismes,per penetracióalcosdesubstànciesoradiacionsdel’exterior,etc.
Algunesdelesalteracionsdelsistemaimmunològicsónlessegüents:
– Hipersensibilitatimmunitàriaoal·lèrgies. Consisteixenenreaccionsdesmesuradesimaldirigidescontraantígensque,encondicionsnormals,noprovoquenreaccionsimportants.
– Reaccionsderebuig enelstrasplantamentsd’òrgans.Requereixenl’administraciódefàrmacsimmunosupressors,comaralaciclosporina.
– Reaccionsd’autoimmunitat (malaltiesautoimmunes),enlesqualsl’organismenoreconeixcomapropisalgunsteixitsi,consegüentment,elsataca.En sónbonsexemplesl’esclerosimúltiple(afectadeterminadesneurones)ialguns tipusdediabetis(destrucciódelescèl·lulesdelpàncreesquesecretenlainsulina).
– Immunodeficiències ofuncionamentincorrecteoparciald’algunesdeles cèl·lulesimplicadesenlarespostaimmunitària,comaraelslimfòcits.S’incrementenlafreqüènciailagravetatdelesinfeccions,itambéeldesenvolupament detumors.Elsnens-bombollapresentenunamancança,d’origengenètic,enla respostaimmunitària.Algunesimmunodeficiènciesestractendemanerasatisfactòriaambeltrasplantamentdemedul·laòssia.
– Malaltiesimmunoproliferatives,queesdesenvolupenquanundeterminattipusdecèl·lulesimmunitàries,comaraelsleucòcits,proliferendemanera anormaliexagerada.N’ésunexemplelaleucèmia.
• Natural (o innata ).S’adquireixpermitjansbiològics.
– Activa. L’organismedesenvolupaanticossosespecíficscomarespostaala presènciad’unantigen.Ésperdurableipotdurartotalavida.
– Passiva. Pròpiadelfetusodelnadó.Lasubministralamareatravésdela placentaolalletiduranomésunesquantessetmanesopocsmesos,el tempsquedurenelsanticossos.
• Artificial. S’adquireixmitjançantunateràpiaountractament.
– Activa .Sónlesvacunes.S’estimulal’organismeperquèprodueixiels anticossosespecíficscontraagentspatògensquelisónsubministratsde maneraatenuada.Estractademesurespreventives,perdurablesi,finsitot, definitives.
– Passiva. S’adquireixamblaseroteràpia,queconsisteixasubministrar sèrumsanguinid’undonadorimmune(unanimalelsèrumsanguini delqualcontéelsanticossosgeneratsperlainoculacióprèviadels microorganismesquecausenlamalaltiacontralaqualesvollluitar). Serveixcomaajudasilarespostaimmunitàriaactivaésinsuficient.Laseva duradaéslimitada.
Avegades,hihapersonesque,peruna mancançad’origengenèticenelsistema immunològic,handeviuretotalment aïlladesdelsgèrmensqueensenvolten.
Lamaduraciódelslimfòcits.
Cèl·lules maredels limfòcits
Lescèl·lulesimmunitàriessóncèl·lulessanguíniesdelgrupdels leucòcitsoglòbulsblancs,quesovintestrobenenaltresteixitsforadelsvasossanguinis.Segons lescaracterístiquesdelnucli,elsleucòcitsesclassifiquenen mononuclears (amb unsolnucli)i polinuclears (ambunsolnuclipolilobulatque,observatal microscopi,falaimpressiódesermúltiple).
Elsleucòcitss’originenalamedul·laòssiaimentrequen’hihaalgunsque maduren(adquireixenlaimmunocompetència)enlamateixamedul·laòssia, d’altreshofanenelsòrganslimfoides.
Els limfòcits sónelsleucòcitsméspetits,representenentreel25iel30%del totaldelsglòbulsblancsise’ndistingeixendosgrupsprincipals,anomenatsBi T.Els limfòcitsB sónelsagentsdelarespostaimmunitàriahumoral:produeixenanticossosoimmunoglobulinesqueinactivenodestrueixenelsantígens. Aquestslimfòcitss’originenalamedul·laòssia,hiadquireixenlaimmunocompetènciaialgunsd’ellsestransformenen plasmòcits o cèl·lulesplasmàtiques. L’activitatdelslimfòcitsBésmoderadapelslimfòcitssupressors,quen’esmorteeixenlarespostaperimpedirqueesdirigeixicontraelementsdelpropicos.Els limfòcitsT s’originenalamedul·laòssiaiadquireixenlaimmunocompetència eneltim,desd’onpassenalasang.Aquestslimfòcitssónelsagentsdelarespostaimmunitàriacel·lular.EntreelslimfòcitsThihaels limfòcitsT-8citotòxics, quereconeixenidestrueixendirectamentlescèl·lulesportadoresd’antígensal mateixtempsquealliberensubstànciesqueatreuenleucòcitsfagocitòticsin’estimulenlamultiplicació,iels limfòcitsT-4col·laboradors o cooperadors (cèl·lulesTh),quereconeixenantígensancoratsalasuperfícied’algunescèl·lules isecretenlimfocinesqueactivenlamaduracióil’activaciód’altresleucòcits,com araelsfagòcits,elslimfòcitsB,etc.
Els granulòcits sónleucòcitspolinuclearsambelcitoplasmad’aspectegranulós,elsqualstenencomamissióprincipalladefagocitarelementsestranys.Els monòcits sónleucòcitsquedonenllocalsmacròfags,lescèl·lulesfagocitàriesmés grans.Tambés’encarreguend’eliminarlesrestescel·lularsprocedentsdelrecanvi normaldelescèl·lulesdelsdiferentsteixits.
Tim LimfòcitT LimfòcitB
Medul·la òssia vermella
Medul·laòssia
Antígenscirculants
Antígenscirculants
Limfoblastos
Cèl·lulesambmemòria
Respostaimmunitàriacel·lular
Cèl·lulesambmemòria
Respostaimmunitàriahumoral
Producciód’anticossos
Cèl·lulesplasmàtiques
Fasesambquèelsistemaimmunològicdefensal’organisme
–Quanunantigen(bacteri,cèl·lulesalienes,proteïnesestranyes,etc.)penetra enl’organisme,algunsleucòcitsl’ingereixen(fagocitosi)ieltrenquenenfragmentsanomenats pèptidsantigènics.Lafagocitosiespotdesenvoluparenqualsevolpartdelcos,ja quelescèl·lulesqueladuena termeestrobenentotselsteixits.
Antigenfagocitat
Aquestaprimerafasedeladefensaimmunitàrias’anomena respostaimmunitàriainespecífica
–Mitjançantlesproteïnesdelsistemad’histocompatibilitathumana(HLA),elsleucòcitsfagocitarisi elspèptidsantigènicssóndisposatsenlamembranacel·lulari «mostrats»o«presentats»ales altrescèl·lulesdelsistemaimmunològic.
–ElslimfòcitsTpresentenala sevasuperfíciecel·lularreceptors quereconeixenelspèptidsantigènicsiespodenunirambells.Els limfòcitsT,activatsperaquest reconeixement,esdivideixende maneraactivaisecretenlimfocinesquemobilitzenaltrescèl·lules delsistemaimmunològic,elslimfòcitsB.
–QuanunantigenentraencontacteambelslimfòcitsBcirculants,aquestsestransformenen cèl·lulesplasmàtiquesqueelaborenanticossos.Ésla resposta immunitàriahumoral.
–Mitjançantlaunióambels corresponentsanticossos,elsantígenssónneutralitzatsidestruïts.
–AlgunslimfòcitsBiTadquireixenunamemòriaimmunitària,a travésdelaqualestimularanelsistemaimmunològicpereliminarel mateixantigensiaquestespresentadenou.
–ProducciódelimfòcitsTespecíficsquedestrueixenlescèl·lules quecontenenantígensoles cèl·lulesalienes.Ésla resposta immunitàriacel·lular.
Pèptidantigènic
Cèl·lulapresentadora del’antigen
AntigenHLA Pèptid antigènic
Receptordela cèl·lulaT
AntigenHLA
Complexentre elpèptid antigènici l’antigenHLA
LimfòcitTambmolèculesreceptoresdelcomplexentreelpèptid antigènicil’antigen HLA
Divisióiactivació delslimfòcitsT
Limfocines
LimfòcitsT activats
SecreciódelimfocinespelslimfòcitsT
Activaciódels limfòcitsB
LimfòcitsB activats
Neutralització idestrucció del’antigen
Secreció d’anticossos
Anticossos
Elsanticossossónproteïnesdelgrupdelesimmunoglobulines,sintetitzadespelslimfòcitsB,quetenenlafunciód’unir-seaunantigen perneutralitzar-loidestruir-lo.ElsanticossosespodentrobarancoratsalamembranadelslimfòcitsB(receptorsdemembrana)olliuresalasangialalimfa.Defet,aproximadamentel20%delesproteïnesdelplasmasanguinihumàsónanticossos.
Elsistemaimmunològicpotproduiranticossoscontraqualsevolcosa, finsitotcontrasubstànciessintetitzadesperlaindústriaquímica.Per explicarlagranvarietatd’anticossos,s’acceptalateoriadela selecció clonal.
Cadaanticòséscodificatperunúnicgenconstituïtperunmínim detresfragmentsgenèticsdiferents,triatsentremésdecent,quesón tallatsicol·locatsl’unacontinuaciódel’altre.Elssegmentsd’aquests genspodenmutaraunavelocitatmoltsuperiorquelarestadelgenoma.Aquestesduescaracterístiquesexpliquenlagranvarietatd’anticossosquepotproduirelsistemaimmunològic.
Un antigen (etimològicament,‘elqueengendraelseucontrari’)és qualsevolsubstànciaque,introduïdaalcos,provocalaformaciód’anticossos.Elcoscatalogacomaantigentotelqueliésestrany:virus, bacteris,altresparàsits,cèl·lulesiteixitsd’altresindividus,gransde pol·len,polsisubstànciesquímiquesmoltdiverses.
Entermesimmunològics,elsantígenssónlesmolèculesquedesencadenenlarespostaimmunitària.Enrealitat,l’organismeresponauna partmoltconcretadel’antigen,anomenada epítop, determinantantigènic o centreantigènic.Malgratqueunreduïtnombred’antígens sónglúcids,lípidsoàcidsnucleics,lamajorpartdelsantígensconegutssónproteïnes.
Hihacincclassesdiferentsd’anticossos:IgM,IgG,IgA,IgEiIgD. Esdistingeixentantperlasevaestructuramolecularcomperles sevesfuncions,queenalgunscasosnoesconeixenproubé. – IgMoimmunoglobulinaM.Ésl’anticòsqueesprodueix desprésdelaprimeraexposicióaunantigenenladenominada respostaprimàriaiéselprimeranticòsquefabricaunlimfòcitB. Sorgeixentreuns10iuns14diesdesprésdel’exposició,perexemple,desprésd’unaprimeravacunació.ElsIgMsónnombrososala sang,perònormalmentnosónpresentsnialsòrgansnialsteixits. Sónmolèculesgranspentàmeres,formadesperlauniódecinc pecesbàsiques(monòmers)enformadeY.Activenelsmacròfagsi lesproteïnesdelcomplement(proteïnescapacesdematarles
LimfòcitB
– IgGogammaglobulinestípiques.Constitueixeneltipusmésfreqüent d’anticossospresentsalasang,responsablesdelarespostasecundària.Tenen unaestructuramoleculartípicaenformadeY.Esprodueixendesprésde diversesexposicionsal’antigen(perexemple,desprésd’unasegonadoside vacuna)id’unamaneramésràpida,enunlapsedetansols5a7dies.Activenelcomplementis’uneixenalsleucòcitsfagocitaris.Estrobenalasangi alsteixits.Estractadel’únicaclassed’anticossosquepassendelamareal fetusatravésdelaplacentaiprotegeixenelnounatenelsprimersmesosde vidaconferint-liimmunitatcongènitapassivafinsquenomaduraelsistema immunològic.
– IgA .Exerceixenunamissióimportantíssimadavantdelainvasióde microorganismesatravésdelesmucoses.Estanpresentsalasangisón transportatscapalacaraexternadelsepitelis,detalmaneraqueestrobenenlessecrecionsrespiratòriesiintestinals,lesllàgrimes,lasalivaila lletmaterna.Podenexistirenformademonòmersodedímersmoleculars.
– IgE.Sónanticossosproductorsdelesreaccionsal·lèrgiquesagudeso immediates.Sónmonomèrics.Estrobenprincipalmentalsteixits,ons’uneixenalamembranadelsmastòcits.Elcontacteambunantigendesencadena l’alliberaciód’histamina(causantdelareaccióal·lèrgica)perpartd’aquestes cèl·lules.Encaraquenoesconeixdeltotlasevafunciópositiva,escreuque podencontribuiraladefensaenfrontdelsparàsits.
IgD.Estrobenalasangenconcentracionsmoltpetites.Tenenestructuramonomèrica.Lasevafunciónoesconeixgaire.
5.3.Laseleccióclonaldelsanticossos
Lamedul·laòssiadel’organismeelaborademaneracontínuauna extraordinàriavarietatdelimfòcitsB.CadavarietatdelimfòcitsBportaunsoltipusd’anticossosalasuperfíciecel·lular.Quanunantigen penetraeneltorrentcirculatori,l’anticòsd’alguntipusdelimfòcitB elreconeixis’hiacobla.ElslimfòcitsBtriatsoseleccionatsesdivideixenis’activen,secretantialliberantanticossosqueneutralitzaran l’antigen.
5.4.Lesproteïnesd’histocompatibilitat: elcarnetd’identitatbiològic
Aexcepciódelsbessonsunivitel·lins,cadaindividuhumàésúnic.Les sevesproteïnessónelresultatdel’expressiódelseugenoma.
Lescèl·lulespresentenalasuperfíciedelamembranaunesproteïnesqueactuencoma marcadorscel·lulars iques’anomenen proteïnes o antígensd’histocompatibilitat ,o sistemaHLA ( Human Leucocyte-associatedAntigen ).Aquestesproteïnessónlescausantsde laidentitatbiològicadel’individu,unveritablecarnetd’identitatbiocèl·lulesalesqualsestanunitselsanticossos).
Antigen
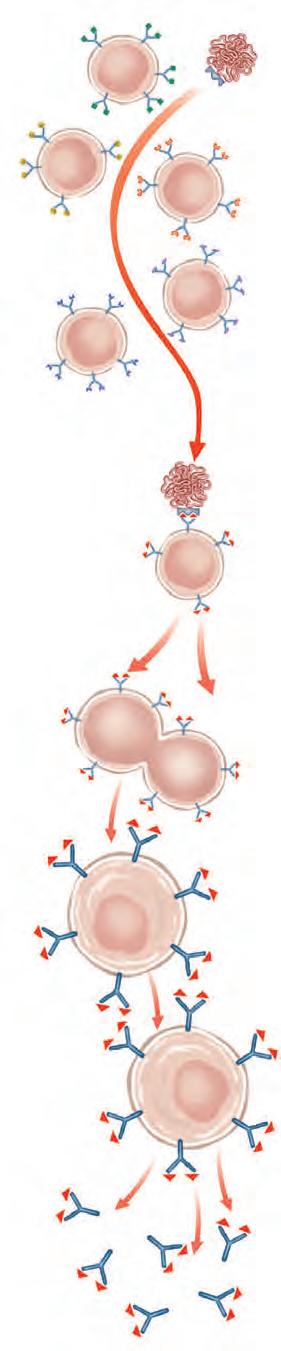
Multiplicacióper mitosidellimfòcitB ambanticossosde membranaafinsa l’antigen. Anticossos lliures Seccióclonaldelsanticossos.
LimfòcitB activato cèl·lula plasmàtica
Lesreaccionsal·lèrgiquesoreaccionsd’hipersensibilitatsónreaccionsdelsistemaimmunològic queprovoquenlesionsenelsteixitssans.Cadareaccióal·lèrgicaés desencadenadaperunal·lergogen específic.Identificar-losolcomportarunacurosarecercaperpartdel metge,quesovintrecorreatests cutanis.
Uncopidentificatl’al·lergogen, acostumaaserméseficaçevitar-lo quetractarlareaccióal·lèrgica. Quannoéspossibleevitarentrar encontacteambl’al·lergogencausantdelareaccióal·lèrgica,espot recórreralaimmunoteràpia.Sovint,però,aquestapràcticademanauntractamentllarg,ambinjeccionsfreqüentsdepetitesquantitatsd’al·lergogen.Amés,la immunoteràpianosempretéuna efectivitatquecompensiclarament elcostiladuradadeltractament.
lògic.Lesproteïnesd’histocompatibilitatresultendel’expressiód’un grupdegensqueestrobaalbraçcurtdelcromosoma6iques’anomena CMH (ComplexMajord’Histocompatibilitat).Alasuperfície d’algunsleucòcits,aquestesproteïnesd’histocompatibilitatdesenvolupenunpaperessencialenlesreaccionsimmunitàries,jaquesón lescausantsdelsproblemesderebuigqueesprodueixeneneltrasplantamentdeteixitsiòrgans.
S’anomena hipersensibilitat l’incrementdelarespostaimmunitària finsanivellsperjudicialsperal’organisme.L’al·lèrgia ésqualsevol reacciód’hipersensibilitatenfrontd’antígensestranys.Enlespersones al·lèrgiques,algunselementsdelsistemaimmunològicactuendemaneradesmesuradacontrasubstànciesque,encondicionsnormals,són innòcues.Els al·lergògens sónelsantígenscausantsd’unaal·lèrgia.Els mésfreqüentssónelssegüents:
–lapols,mésconcretamentlesrestesd’àcarscontingudesalapols; –lesesporesielpol·lendelesplantes; –algunesrestesd’animals,comaraelspèlsdelsmamífers; –algunessubstànciessecretadespelsparàsits; –lessubstànciescontingudesenalgunsaliments; –algunsmedicaments,comaralapenicil·lina; –algunessubstànciesutilitzadesendiversostipusd’indústries,com aralacosmètica,laquímica,labijuteria,etc.
Lesrespostesal·lèrgiquesespodenproduirendiferentspartsdel cos:
–enlesviesrespiratòriessuperiors,onelsefectesconsisteixenen esternutsicongestiónasal;
–enlesviesrespiratòriesinferiors,onprovoquenconstriccióiobturaciódelsbronquis,totparticipantdelssímptomesasmàtics; –enlapell,ambcoïssor,urticària,lesionscutànies,etc.; –enl’aparelldigestiu,onpodenprovocarnàusees,espasmesabdominals,diarreesivòmits;
–enlasang,onespotproduirunareaccióanafilàcticaquecomportainflamació,perpermeabilitatcapil·lar,icontracciódelamusculaturallisa,laqualprovocaofeci,avegades,lamort.
Eltractamentdelesal·lèrgiesrequereixladeterminacióde l’al·lergogencausant,queesfamitjançantprovescutànies,posantsobre lapelldeldorsodelbraçextractesdelspossiblesantígens.Laidentificaciódel’al·lergogenvedonadaperlareacciólocalqueocasiona enrogiment,inflamació,etc.Unavegadaidentificatl’al·lergogen,es potiniciaruntractamenthiposensibilitzadorinoculantdosisfeblesi repetidesdelsal·lergògenscausants.
Lasubstituciód’unòrganmalalthaestatunadelesgransesperancesdela medicina.Lesprimerestransfusionssanguínies,veritablestrasplantaments d’unteixit,esvanportaratermealcomençamentdelsegle XX.Desprésvan venirelstrasplantamentsdecòrnia,ronyó,cor,fetge,pàncrees,pulmons, medul·laòssia,etc.
Enl’actualitat,eltrasplantamentd’òrgansplantejafonamentalmentdos problemes:l’obtenciód’òrgansadequatsielrebuig.Pelquefaalprimerproblema,elsòrgansadequatss’obtenengairebésempredecadàversi,silaconservacióéspossible,escreenbancsd’òrgans.Enmoltscasos(cor,fetge,pulmons,etc.),ladifícilconservaciódelsòrgansquehandesertrasplantatsobligaaactuarambgranrapidesa,detalmaneraquetranscorricommenys tempsmillorentrel’extraccióilaimplantaciód’unòrgan.
Lapossibilitatdeferserviròrgansprocedentsd’altresanimals,comaraels porcsielsprimats(xenotrasplantaments),plantejaproblemesencarano resolts.
Perevitarolimitarelproblemadelrebuig,ésadir,lareacciódelsistema immunològicdelreceptor,quereconeixcomaestranyl’òrganoelteixittrasplantat,elstrasplantamentsrequereixenl’administraciódesubstànciesimmunosupressores,quedisminueixenlarespostaimmunitària.
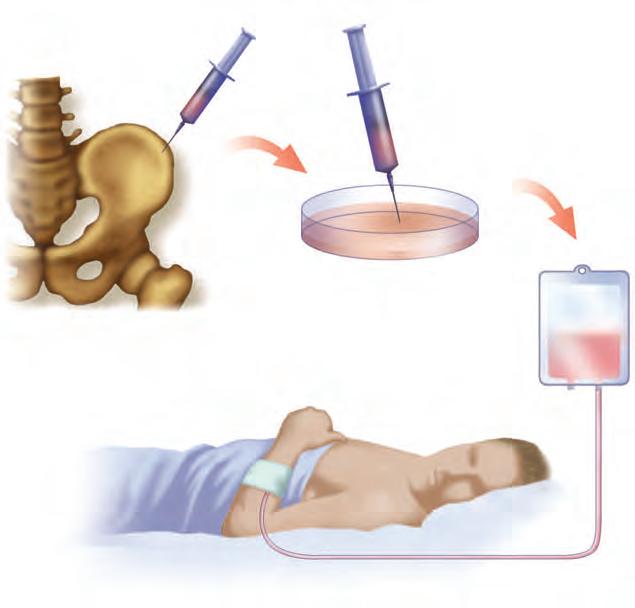
Algunesdadesambrelació alstransplantamentsd’òrganssòlids realitzatsalscentressanitaris deCatalunya
Elprimertransplantamentd’òrgan sòlidrealitzataCatalunyavaser deronyól’any1971.Finsafinals del’any2007s’hanrealitzatun totalde13897òrgans,un11% mésqueeltotalacumulatafinals del’any2006.
Lesprincipalsdadesde transplantamentssónlessegüents:
Transplantamentrenal Període1971-2007........8813 Any2006.................408 66dedonant(viu) Any2007..........468(+15%) 76dedonantviu
Transplantamenthepàtic Període1984-2007........3453 Any2006.................205 Any2007...........211(+3%) 5dedonantviu
Transplantamentdecor Període1984-2007..........844
Any2006..................39 Any2007..................39
Transplantamentpulmonar Període1990-2007..........394 Any2006..................26 Any2007...........43(+53%)
Transplantamentdepàncrees Període1983-2007..........393 Any2006..................28 Any2007...........26(–11%)
Extracciódemedul·laòssia d’undonantcompatible, generalmentperpunxadaen l’osilíac.
Preparació,seleccióipreservaciódela medul·laòssia,especialmentdelescèl·lules marequeoriginenlescèl·lulesimmunitàries. Existeixenbancsdemolldel’os,alsqualses demanamedul·laquesiguicomméscompatiblemillorambl’aspirantareceptor.
Preparaciódelreceptor,lamedul·laòssiadelqual,enlamajorpartdelscasos,caldrà destruirmitjançanttractamentsdequimioteràpiairadioteràpia.Transfusiópervia endovenosadelanovamedul·laòssia.Elreceptorésmantingutenunambientestèrili alcapdeduesotressetmanescomençaaproduirnovescèl·lules.
Trasplantamentdemedul·laòssia.
L’al·lèrgia ésunareacciód’hipersensibilitatdavantdedeterminatsantígensespecífics.
Anticòs. Molèculadeproteïna,tambéanomenadaimmunoglobulina,fabricadapelslimfòcitsB,capaçdereaccionarambunantigenespecífic,bloquejar-lo idestruir-lo.
Antigen. Qualsevolsubstànciamolecularcapaçdedesencadenarlaproducció d’anticossos.
Apoptosi. Fenomendemortcel·lularprogramada.Elprocésestàregulatper senyalsprocedentsd’altrescèl·lules.
Cèl·lulaplasmàtica. LimfòcitBmadurquefabricaanticossos.
Citoquina. Proteïnasolublesecretada,enrespostaaunestímul,percèl·lules immunitàriesperregulariestimularlarespostaimmunitària.Ensónexemples leslimfocines,lesinterleucinesil’interferó.
Complexsuperiord’histocompatibilitat(CMH). Grupdemolècules–úniques peracadaindividu–,tambéanomenadessistemaHLA,quefaunpaperdestacatenlacapacitatdel’organismeperdistingirelqueéspropidelqueés estrany.Toteslescèl·lulesdel’organisme(tretdelsglòbulsvermells)presenten aquestesmolèculesdesuperfície.Totacèl·lulaquemostramolèculesCMHidèntiquesésignorada(tolerada)itotacèl·lulaquelesmostridiferentsésrebutjada. Epítop. Dittambéanomenatdeterminantocentreantigènic,éslapartmés petitadelamolèculad’antigencapaçdesuscitarlarespostadelsistemaimmunològic.
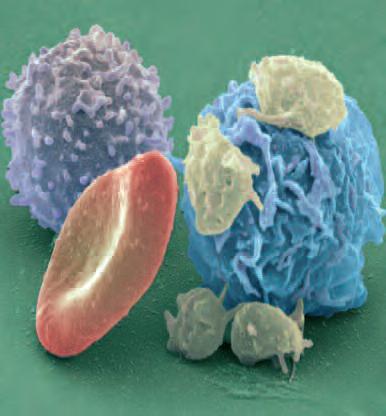
Fotografia(enfalscolor)decèl·lules sanguínesvistesalmicroscopielectrònic derastreig.S’hipotveureuneritòcit(en vermell);quatreplaquetes(enverdclar); idosleucòcits,unlimfòcit(enblau)iun neutròfil(enlila).
Histocompatibilitat. Tolerànciaentreteixits,determinadasobretotperlesmolèculesdelcomplexsuperiord’histocompatibilitat(CMH).Enlapràcticadelstrasplantaments,l’anàlisidelahistocompatibilitatpermetavaluarlespossibilitats d’acceptacióorebuig.
Immunoglobulina. Anticòs.
Leucòcit. Cèl·lulasanguínianucleada,tambéanomenadaglòbulblanc.Esdivideixengranulòcitsoneutròfils,eosinòfils,basòfils,limfòcitsimonòcits.
Limfòcit. Cèl·lulaprincipaldelsistemaimmunològic.HihalimfòcitsBilimfòcitsT.
LimfòcitB. Tambéanomenatcèl·lulaB.Limfòcitques’originaimaduraenla medul·laòssiavermella.Encontacteambunantigenmaduraiestransforma enunacèl·lulaplasmàtica,productorad’anticossos.
LimfòcitT. Limfòcitques’originaenlamedul·laperòmaduraeneltim.Regeix ladefensadelaidentitatpròpiadel’organismeiestimulaelrebuigdelqueés estrany.Esdivideixentresgrups:cèl·lulesTcol·laboradores,queajudenaltres cèl·lulesadestruirelsmicrobis;cèl·lulesTsupressores,queinhibeixenl’activitatdel sistemaimmunològicenfrontdelspropisteixits,icèl·lulesTcitotòxiquesoassassines,queidentifiquenidestrueixenlescèl·lulesportadoresdelspèptidsantigènics.
Macròfag.Cèl·luladefensiva,derivadad’unmonòcit,presentalsteixits,on ingereix,perfagocitosi,elsmicroorganismesqueelslimfòcitshanassenyalatamb anticossosques’adhereixenalasuperfíciemicrobiana.
Mastòcit. Cèl·luladefensiva(enrealitatuntipusdeleucòcitbasòfil),anomenadatambécèl·lulaencebada,que,enpresènciad’unantigen,alliberahistaminai altresmediadorsquímicsqueprovoquenlainflamaciólocaldelsteixits.Aquesta inflamacióafavoreixl’acciódelsistemaimmunològic.
4.18. Copiaicompletalataulasegüent:
Cèl·lulaimmunitària
Granulòcit
Limfòcitsupressor
LimfòcitB
Macròfag
Origen
Funció
4.19. Quinssónelsòrganslimfoidesprimaris?Descriulasevasituacióanatòmicailasevafunció.
4.20. Defineix vacuna iexplicaelseumecanismed’acció.Esmenta tresdelesvacunesques’administrendemanerageneralalsinfants. Esbrinal’etimologiadelterme vacuna.
4.21. LouisPasteurésconsideratelfundadordelamicrobiologia modernaivaserelprimeradonarunaexplicaciócientíficaal’acció delesvacunes.Fentlesconsultesoportunes,escriuunabreubiografiad’aquestcientíficfrancèsiexplicaalgunadelessevesprincipals aportacionscientífiques.
4.22. Copiaaquesttexticompleta’nelsespaisbuitsamblesparaulessegüents: microorganismes,plasma,pròpies,oposar-se,anticossos, memòria,malaltiesinfeccioses,immunologia,reconèixer i immunoglobulines
La…estudialanaturalesadeles….Laimmunitatéslacapacitatd’…al’entradaalcosde…,decèl·lulesestranyesodemolèculesno….Laimmunitatartificialpassivas’adquireixadministrant…específics.
Elsistemaimmunològicdisposad’una…quelipermet… microorganismesambelsqualshaestatencontacteiintentar destruir-los.
Elsanticossossónproteïnesdel…,delgrupdeles….
4.23. Explicaenquèconsisteixelrebuigenelstrasplantamentsd’òrgansiquèsónelsimmunosupressors.
4.24. Buscainformaciósobreelsòrgansqueestrasplantenambmés freqüència.Quèsónelsbancsd’òrgans?
4.25. Explicaenquintipusdemalaltsod’accidentatssónnecessàries lestransfusionsdesang.
Elsfàrmacsimmunosupressorssón substànciesquímiquesquedisminueixenlarespostaimmunitària, ésadir,suprimeixenlainflamació, malmetenelslimfòcits,etc.Per aquestmotiuespodenutilitzar percombatrelesreaccionsderebuigenelstrasplantamentsd’òrgansoenelscasosgreusd’artritis reumàtica.Tanmateix,commolts medicaments,podenpresentar efectessecundarisimportants.
1981: Primerscasosdescritsdesida,alsEstatsUnits(LosAngelesi NovaYork).Aixònoobstant,les tracesd’anticossosanti-VIHmés antiguess’hantrobatenmostres desangcongeladesprocedents delZaire(1959)ielsEstatsUnits (1968).
1982: ElCentredeControlde Malaltiesd’Atlantafixaelnomde lanovamalaltia:síndromed’immunodeficiènciaadquirida(sida).
1983-1984: ElfrancèsLucMontagnierielnord-americàRobert GallodescobreixenelVIH.
1984: EsdescobreixquelaproteïnaCD4actuacomareceptor cel·lulardelVIH.
1985: Seqüenciaciódelgenoma delVIH.Primeresprovesdisponiblesperaldiagnòsticdelainfeció.
1986: Descobrimentdel VIH-2.Esconfirmaquelaproteïna CD4éselreceptorcel·lulardel VIH.S’iniciaeltractamentambzidovudina(AZT)i,enanyssuccessius,ambaltresinhibidorsdela retrotranscriptasa.
1995: Inicidelstractamentsexperimentalsambinhibidorsdela proteasa(comercialitzadael1996) idelateràpiacombinada.
1996: Descobrimentdelscoreceptorsviralscel·lulars.
1999: Esdesenvolupennousmedicamentsexperimentalsinhibidors delafusiódelvirusamblacèl·lula.
2007: Propde40milionsdepersonessónportadoresdelVIH.Des del’inicidel’epidèmia,mésde20 milionsdepersoneshanmortde sida.
L’AgènciaEuropeadelMedicament(EMEA)autoritzal’úsd’un noufàrmacanomenatAtripla,que combinaenunaúnicapíndolatres delsantiretroviralsmésusats.
Lasida(síndromed’immunodeficiènciaadquirida)
Síndrome: conjuntdesímptomesquecaracteritzenunamalaltia. Immuno: relatiualsistemadefensiuoimmunològicdelcos. Deficiència: malfuncionament.
Adquirida: quenoéscongènita.
La sida noés,enrealitat,unamalaltiaconcreta,sinóunconjuntdesímptomescaracterísticsdediversesmalalties,comarainfeccionsoportunistes(ésa dir,infeccionsqueencondicionsnormalspodensersuperades,peròqueenpersonesafectadesperlasidasónmoltgreusisovintmortals),diversostipusde càncers(especialmentdepell)ialteracionsenlesneurones.
Lasidaésprovocadaperla infecciód’unvirus quehaestatidentificat, aïllatiobservatalmicroscopielectrònic.L’estructurageneral,elgenomaiel ciclevitald’aquestvirusesconeixenambdetall.
Lasidaésunaepidèmiad’abastmundialquenombrososespecialistesconsiderenelproblemadesalutmésgreudelesprimeresdècadesdelsegle XXI.En alguneszones,comaraal’AmèricadelNordoabonapartdel’Europaoccidental,s’haproduïtunadesacceleraciódel’apariciódenouscasosdelamalaltia,peròenaltreszonesdelmón,comaraal’Àfricasubsaharianaienalguneszonesdel’ExtremOrient,l’epidèmiaavançacontínuament.
Perreproduir-se,elvirusdelasidautilitzacomacèl·luleshosteslescèl·lules bàsiquesdelsistemaimmunològichumà,elslimfòcitsCD4;d’aquestamaneracausaunadestruccióprogressivadelesdefensesiafavoreixl’apariciód’infeccionsoportunistes.
Allòqueesconeixambelnomdesidaés,enrealitat,ladarrerafasedelainfeccióprovocadapelvirusVIH(virusdelaimmunodeficiènciahumanaadquirida).Eneldesenvolupamentd’aquestainfecció,esdistingeixenlesfasessegüents:
a) Faseoperíoded’infeccióaguda,queveimmediatamentdesprésdel contagiiqueduraentreunaisissetmanes.Durantaquestafase,elviruses multiplicademaneraràpida,peròlapersonainfectadaencaranopresenta anticossosespecíficscontraelvirus.Lapresènciad’aquestúnicamentescomprovamitjançantanàlisisqueposindemanifestlapresènciadelmaterial genèticdelvirus.Enlamajorpartdelscasosaquestafasedelainfecciópassadesapercebuda,jaqueelssímptomesqueoriginasónsemblantsalsd’una grip(maldecap,dolorsarticulars,trastornsdigestius,etc.)queremetende maneraespontània.Enaquestafaselespersonesafectades japodentransmetreelvirus.
b) Faseasimptomàtica. S’iniciaentretressetmanesitresmesosdesprésde lainfecció,quanl’organismecomençaaproduiranticossosespecíficsmanifestablesambanàlisissenzilles.Enlamajorpartdelscasos,aquestafaseescaracteritzaperuncertequilibrideforcesentreelsistemaimmunològicielvirus, queesmultiplicasenseparar.Laduradadelafaseasimptomàticaésindeterminadai,araperara,indeterminable.
Cèl·lulesCD4
Concentraciórelativa
c) Fasededeterioramentdelsistemaimmunològic. Tardod’hora,sovintalcapd’unsanys, l’equilibridelafaseanteriorestrencaiapareixen demanerarelativamentbruscalesmanifestacions mésgreusicaracterístiquesdelainfecció:lesionsa lescèl·lulesdelsistemanerviósidel’aparelldigestiuiundeterioramentprogressiudelsistema immunològic,causatperlacontínuaimassiva destrucciódelessevescèl·lulesbàsiques,elslimfòcitsCD4,quesónparasitatspelVIH.Aquestdeterioramentfaquel’organismesiguiespecialment febledavantcertesinfeccionsoportunistes,que afectenelspulmons(pneumònia,tuberculosi),l’aparelldigestiu(diarrees,infeccionsperfongsiprotozous),lapell,elcervell,etc.Característicd’aquestafaseéseldesenvolupamentdecertstipusdecàncers,comaraelsarcomadeKaposi,queafectala pellialtresòrgans,ielslimfomes,queafectenelsistemalimfàtic.
CaracterístiquesdelVIH
Comlarestadevirus,elVIHésun paràsitintracel·lularobligat,ésadir, únicamentpotsobreviureireplicar-seal’interiordecèl·lulesvives,aprofitantsedelessevesestructuresidestruint-les.Elvirusdelasidaparasitaidestrueix preferentmentuntipusdeglòbulsblancs,elslimfòcitsT4,quedesenvolupen unpaperdecisiuenlarespostaimmunitàriahumana.Altrescèl·lulesparasitadessónelsmacròfags,lescèl·lulesnerviosesilesdelamucosaintestinal.
Estractad’unvirusdel tipusARN,jaqueelseumaterialgenèticogenomaestàformatperduesfibresd’àcidribonucleic.
Pertanyalgrupdels retrovirus quetenenalanucleocàpsidal’enzim transcriptasainversa o retrotranscriptasa. UncopelVIHpenetraenuna cèl·lula,aquestenzimtranscriul’ARNvíricenADN,quedesprésésintegrat enl’ADNdelacèl·lulahoste.Aquestprocésdetranscripcióésinversalquees produeixalescèl·lules.
Embolcallextern(membrana)
ARN Bicapalipídica
Nucleocàpsida (contéelmaterial genèticdel virusidiferents enzims)
Transcriptasa inversao retrotranscriptasa: enzimque,uncop queelvirusha penetratenlacèl·lula hoste,transcriul’ARN víricenADN,ques’incorpora algenomadelacèl·lula infectada
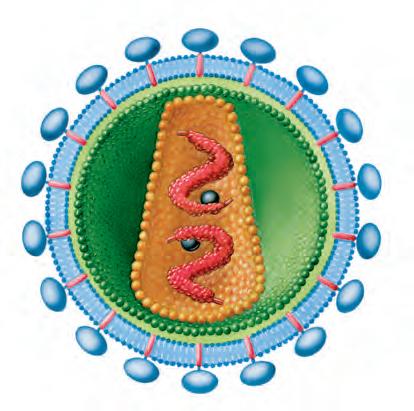
Proteïnesgp120
Proteïnap41, immersaen labicapa lipídica
Proteïnesde lamatriu,p17 ip18
Infecció asimptomàtica
Anticossos
Virus
Càpsida icosaèdrica
Transició Simptomàtic Sida
Infecció avançada
Lestresfasesdelainfecciópelvirusdela sidailarespostaimmunitàriadavantdel VIH.
ElvirusVIHésunapartículagairebé esfèrica,ambundiàmetreentre80i100 nanòmetres,formadaperunembolcall externiperunazonacentralo nucleocàpsidaquecontéelgenomavíric.
La sida ésprovocadaperunvirus(VIH) ambARNqueparasitalescèl·lulesbàsiquesdelsistemaimmunològic.
Esconeixendostipusdevirusdelasida,elVIH-1ielVIH-2.Aquest segontéunadistribuciórestringidaacerteszonesdel’Àfricaoccidental,és detransmissiómésdifícilqueelVIH-1iésmenyspatogen,jaquetransmet lamalaltiaambmenysfreqüènciaiambmenysrapidesa.Sembla,d’altra banda,quelainfeccióperVIH-2provocaunacertaresistènciacontrael VIH-1.
Durantelprocésdereplicació,elvirusdelasidaexperimentafreqüents mutacions,ésadir,«errors»enl’ARNqueesmanifestenenformadecanvis enlesproteïnesvíriques.Enunmateixmalaltestrobennombrosesvarietats delvirus.Aquestacaracterísticaéslacausantdelagranresistènciadelvirus delasidaalsmedicamentsidelagrandificultatquehihaperdesenvoluparvacunes.
Amblesdadesdequèesdisposa,s’acceptaqueelVIHesvaoriginara partirdevirussemblantsque,desdefamolttemps,afectendiversosprimatsafricans,sensecausar-lostrastornsimportants.D’altrabanda,la majorpartdelsmamífersempratsenl’experimentaciómèdicanoqueden afectatspelvirusdelasida,laqualcosadificultal’estudiexperimental delVIH.
– Infecció d’unacèl·lulaperpartdelvirus,que travessalamembranacel·lularipenetraenelcitoplasma.Enaquestafase,algunesproteïnesde l’embolcalldelvirus,comaralagp120,ialgunesmolèculespresentsenlasuperfíciedeles cèl·luleshostes,comaralaproteïnaCD4ialtres coreceptors,desenvolupenunpaperfonamental. Unavegadaenelcitoplasma,elvirusesdesfàde l’embolcallidelanucleocàpsida.
– Còpiaotranscripció, mitjançantlaretrotranscriptasa,d’unfilamentd’ARNdelgenoma víricenunacadenasenzillad’ADN.Elvirusutilitza,peraaquestprocés,elsmaterialsielsorgànulsdelacèl·lulainfectada.Acontinuacióes duplical’ADNiesprodueixladegradacióodestrucciódel’ARNoriginaldelgenomavíric.
– Integració del’ADNvíricenelmaterial genèticdelacèl·lulainfectada.
– Replicació. Apartird’aquestmoment,elfuncionamentdelacèl·lulainfectadaesveualteratper lesinstruccionscontingudesenelmaterialgenètic delvirusiesprodueixlasíntesid’àcidsnucleicsi deproteïnesvíriques,que,unavegadaacoblades, donaranllocanovespartículesvíriques.
– Alliberamentdenousvirus queperforenla membranacel·lulariinicienlainfecciód’altres cèl·lules.
TransmissiódelVIH
Elvirusdelasidaestransmetatravésdelessecrecionssexuals(semenisecrecionsvaginals)idelasang.
1.Transmissiósexual
ÉslaprincipalformadetransmissiódelVIHiéspossibletantenrelacions heterosexualscomhomosexuals.Durantlesrelacionssexuals,vaginalsoanals, esprodueixenpetiteslesionsoerosionsdelesmucoses,atravésdelesqualses podenposarencontacteelsvirusdel’espermaodelessecrecionsvaginalsamb lescèl·lulesquepodenserparasitades.
LaprobabilitatdetransmissiósexualdelVIHaugmenta…
ambelnombredecontactessexuals, sibécaldir,noobstantaixò, queunsolcontactepotsersuficient;
–…amblesrelacionsviaanal, queengeneralsónméstraumàtiquesperquèlamucosaanalésmenyselàstica;
amblapresènciad’altresmalaltiesdetransmissiósexual;
enladireccióhome-dona, encaraquetambéésclaramentpossibleen ladirecciódona-home.
2.Transmissióperlasang
Esprodueixquansangportadoradelvirusesposaencontacteambsangd’individussans.Lesprincipalsviesdetransmissiódelvirusperlasangsónles següents:
–Transfusionsiinjecciódeproductessanguinis. Gràciesal’adopcióde mesuresespecífiquesenmoltspaïsos(controldelesdonacionsdesang,estudi delasangemmagatzemada,etc.),aquestaformadetransmissiódelVIHestà forçacontrolada.
– Úscompartitd’instrumentscontaminatsambsanginfectada. Especialmentgreuéslatransmissióentregrupsdedrogoaddictesquecomparteixen xeringuesiagullesperinjectar-sedroguesperviaendovenosa.Totiqueen principiseriapossiblequeesproduíslatransmissiódelVIHatravésd’altres instruments(instrumentaldedentistes,agullesd’acupuntura,pírcing,fulles d’afaitar,etc.),lapossibilitatrealque aixòpassiésmoltremota.Detota manera,calreclamarlautilització d’instrumentsd’unsolúsoquehagin estatconvenientmentesterilitzats.
– Transmissióenelmedisanitari entremalaltsipersonalsanitari.Sis’acompleixenlesmesurespreventives establertes,lapossibilitatdecontaminacióperaquestaviaésmoltpetita. Totiaixò,siesprodueixunaccident, l’úsdemedicacióanti-VIHfamolt remotelriscd’infecció.
– Transmissiómaternofetal. Sense medicació,elvirusVIHpottransme-
Elvirusdelasidaestransmetatravés delasangidelessecrecionssexuals(semenisecrecionsvaginals).
Dianesdel’actuacióterapèutica: A)BloqueigdelauniódelvirusVIHala cèl·lulaCD4humana.
B)Inhibiciódelatranscriptasainversa. C)Inhibiciódel’acciódelaproteasaide launiódenousvirions.
tre’sdelamarealfetusdurantl’embaràs(atravésdelaplacenta),durantelparti,finsitot,durantl’alletament.
Algunesqüestionssobrelasidaquecaltenirclares: –Els seropositius sónpersonesqueestaninfectadespel virusdelasida.Malgratquenopresentinsímptomesdela malaltia,podentransmetreelvirus.Unavegadas’haproduït elcontagi,aquestvirusnoromaninactiu,sinóqueesreplicademaneraactiva,peròl’organismeencaradisposade defensesperfer-lifront.
–Avuidialasidaésuna malaltiaincurable,ambdos tipusdemanifestacions:lesionscausadespelvirusenelsistemanerviós(encefalopaties,pèrduadefacultatsmentals, etc.)ienl’aparelldigestiu(diarrees,desnutrició,aprimamentextrem,etc.),itrastornscausatspelfuncionamentdeficientdelsistemaimmunològicperdestrucciód’algunslimfòcits.
–Existeixentractamentsqueestabilitzenl’avençdelVIH iallarguenlesexpectativesdevidadelsmalalts.Lesanomenadesteràpiescombinadesielscòctelsdefàrmacsensónun bonexemple.Aqueststractamentspretenenbloquejarlaunió delvirusalacèl·lulaqueintentaparasitar,bloquejarl’acciódelaretrotranscriptasaquetranscriul’ARNdelvirusen unacadenad’ADNiinhibirlaformaciódenovespartículesvíriques.D’altrabanda,eltractamentdelesinfeccions oportunistesidelsprocessosdedesenvolupamentdetumors hamilloratmolt.Aqueststractamentstenenunsefectes secundarisimportantsicaliniciar-losalmésaviatpossible.Elstractaments farmacològicscontralasidasónmoltcarsiestanforadelespossibilitats econòmiquesdelspaïsosafricansidel’Orient,queésonlamalaltiaprogressamés.
–Laprevencióés,sensdubte,lamillormaneradelluitarcontralasida. L’úsdel preservatiu ocondóenlesrelacionssexualsambpenetracióésla prevencióméseficaç.
–Larecercaperobtenirvacunescontralasidaencaranohadonat fruits.S’atorgaunagranimportànciaal’estudidelespersonesquehan estatencontacteambl’epidèmiaiquenohanquedatafectades,aixícom alsseropositiusque,alcapdemoltsanysdelcontagi,nohandesenvolupat lamalaltia.
–Al’actualitatnoéspossibleparlarde grupsderisc enrelacióambla possibilitatdecontraurelasida.Calparlarde pràctiquesderisc.
–Lasidanoestransmetenlessituacionsquotidianesqueposenencontacteunespersonesamblesaltres:saludar,ferpetons,compartirinstal·lacions(llocsdetreball,piscines,bars,lavabos…),manipularobjectes (telèfons,gots,diners…),etc.Elsanimalsdomèsticsnotransmetenlasida inos’hademostratcapcasdetransmissiódelamalaltiaperpicadad’insectesod’altresanimals.
4.26. Copiacadaparaulaosintagmadelprimergrup irelaciona’lambelcorresponentdelsegongrup.
Primergrup:androgen,humoral,somatotropina, epinefrina,hipoglucemiant,hormonaantidiürètica, hipòfisi,epífisi.
Segongrup :adrenalina,insulina,vasopressina, pituïtària,melatonina,hormonadelcreixement,hormonal,testosterona.
4.27. Explicalasituacióanatòmicadelatiroide,les hormonesquesecretail’acciódecadascuna.Descriu comesregulal’activitatd’aquestaglàndula.
4.28. Quèsónleshormonesesteroides?Posa’n exemples.
4.29. Explicaenquèconsisteixlaregulaciódela secrecióhormonalper feedback oretroacció.Descriuneunexemple.
4.30. Digueselnomdelesglàndulesendocrinesque secretenleshormonessegüents:vasopressina,melatonina,FSH,prolactina,GH,glucagó.
4.31. L’adrenalinaésunasubstànciaquímicaque actuacomahormonaicomaneurotransmissor. Contestaalespreguntessegüents:
–Aquingrupquímicd’hormonespertany?
–Quinaglàndulaendocrinalasecreta?
–Quinesfuncionsdesenvolupaaquestahormona enelcosisobrequinsòrgansactua?
4.32. Feslesconsultesbibliogràfiquesoportunesi explicaquèéselgoll.
4.33. Copialesfrasessegüentsiescriualcostatde cadascunasiéscertaofalsa:
a)Leshormonestenenunaclarafuncióenzimàtica.
b)Leshormonesactuensempreadistànciadels òrgansquelessecreten.
c)Elsestrògenssónhormonespeptídiques.
d)L’adrenalinaésunahormonaliposoluble.
e)Elsestrògenssónhormonesderivadesdelcolesterol.
f)Eliodeésnecessariperaunfuncionament correctedelesglàndulessuprarenals.
g)Lacortisonaintervéenlesreaccionsantiinflamatòries.
h)Lahipòfisiestàconnectadaanatòmicamenta l’hipotàlem.
4.34. Explicaduesdelesprincipalscaracterístiques funcionalsdelaneurona.
4.35. Quèsónlescèl·lulesexcitables?Quinessón?
4.36. L’impulsnerviósésunfenomenelèctric.Explicabreumentquèsónelpotencialenrepòsielpotenciald’accióicoms’originen.
4.37. Explicalafunciódelsionscalcienlacontracciómuscular.
4.38. Acausadel’activitatintensaicontinuada,les fibresmuscularspodenesgotarl’ATPqueconteneni tambépodentenirdèficitd’oxigen.Explicaquins trastornsmuscularsesprodueixenenaquestesdues situacions.
4.39. Explicaenquèconsisteixunreflex,comarael rotulià.Esmentaelstipusdeneuronesquehiparticipen.Comprovaambelscompanysilescompanyesde classeelreflexrotulià,elreflexaquil·liàielreflex pupil·lar.Aquècreusqueésdegutelfetqueelsmetgesintentincomprovarelsreflexosenpacients inconscients?
4.40. Copiacadaparaulaosintagmadelprimer grupirelaciona’lambelcorresponentdelsegon grup.
Primergrup:seroteràpia,hipersensibilitat,CMH, queengendraelseucontrari,fagocitosi,leucòcitque s’activaaltim,immunitatartificialactiva.
Segongrup:antigen,macròfag,limfòcitT,vacuna,immunitatartificialpassiva,al·lèrgia,gensdela identitatbiològica.
4.41. Explicaelsignificatdelconceptede memòria immunològica.
4.42. Diguesquèésunamalaltiaautoimmunei posa’nalgunexemple.
4.43. Copialesfrasessegüentsiescriualcostatde cadascunasiéscertaofalsa:
a)Laimmunitatnaturaltélamateixaduradaque lapresènciad’unantigen.
b)L’al·lèrgiaésunaimmunodeficiència.
c)Larespostaimmunitàriacel·lularlaportena termelescèl·lulesfagocitàries.
d)Elsdeterminantsantigènicssóncèl·lulesque esformenaltim.
e)L’anafilaxiéslafasefinaligreud’unaal·lèrgia.
f)L’esclerosimúltipleésunareacciód’hipersensibilitatalapenicil·lina.
g)Laduradadelaimmunitatartificialpassivaés il·limitada.
4.44. Quèsónelsxenotrasplantaments?Quinsanimalssónelsmillorscandidatsperserutilitzatscoma donantsd’òrgansperalséssershumans?
4.45. Defineixiexplicatresalteracionsdefuncionamentquepotpatirelsistemaimmunològic.Quèés unal·lergen?
4.46. Undelsproblemesquepotplantejarladonacióieltrasplantamentd’òrganséslapossibilitatque s’estableixiunmercatd’òrgans,delqualtraurienprofitlespersonesambmésmitjanseconòmics.Enpetits grups,intenteuestablirquinesmesurescaldriaprendreperevitaraquestacomercialització.Desprésfeu lesconsultesoportunespersabersiexisteixenlleiso reglamentsqueintentinimpedirlacomercialització d’òrgans.
4.47. Fesunesquemasimplificatapartirdeldibuix desota,querepresentaelvirusdelasida,iresolles qüestionsquehihaacontinuació:
a)Posaelnomdelesprincipalspartsdelvirusde laimmunodeficiènciahumanaadquirida(VIH).
b)Enelcasd’unahipotèticavacuna,quinesparts delviruscreusmésadequadespergeneraranticossos?
c)ExplicacomhofaelVIHperpenetraral’interiordelescèl·lules.
d)Explicaquinprocésesdesenvoupaal’interiord’unlimfòcitinfectatpelvirusdelasida.
e)Explicaambprecisióaquèensreferimquan parlemdesida.
1. Copialataulad’aquestapàgina,referentaleshormonesialasevaacció,icompleta-la.
2. La diabetismellitus ésunadelesmalaltiesmetabòliquesmésconegudesifreqüents.Consultantla bibliografiadequèdisposis,fesunbreutreballsobre aquestamalaltia.Entreelsaspectesatractar,inclouels següents:
a)Hormonaohormonesambquèestàrelacionada,glàndulaendocrinaquelasecretaitipusde cèl·lulesquel’originen.
b)Procésdelmetabolismequenofuncionaquan s’hadesencadenataquestamalaltia.
c)Principalssímptomesdelamalaltiaimoment delasevaaparició.
d)Quintipusdetractamentdietèticserveixper pal·liarelsefectesdelamalaltia?
e)Comhad’organitzarlasevavidadiàriael malalt?
f)Quintractamentfarmacològicesfaserviride quinamaneras’administrenaquestsmedicaments?
3. Enaquestcapítol,s’haparlatdediversostipusde substànciesqueintervenenenlacoordinació,la comunicacióiladefensadel’organisme.Explicaquinessónaquestesmolècules,ons’origineniquinésel seumecanismed’acció.
4. BuscainformaciósobrelasidaaInterneticontestaalespreguntessegüents:
a)Comesvadescobrirquelamalaltiaeraproduïdaperunvirus?
b)Quinssónelsmecanismesd’acciódelsfàrmacs actuals?
c)Quinessónlesconductesseguresenrelacióamb laprevenciódelasida?
d)Quinaésladistribuciópercontinentsdelscasos desida?
e)Representaenunhistogramadefreqüènciesel nombredecasosdesidaaCatalunyaiaEspanya enrelacióambl’edatilaviadecontagi.
f)Explicasialgunfàrmacantiintegrasapodriaser eficaçcontraelVIH.
Glàndulaquelasecreta
Insulina
Oxitocina
Testosterona
Adrenalina
Calcitonina
Progesterona
Glucagó
FSH
Hormonaantidiürètica
Cortisol
Vasopressina
5. Eneltranscursd’unaexploracióclínicaesmesuren,aintervalsde30minuts,laconcentraciódeglucosa(enmg/dL)id’insulina(en µU/mL)ensang d’unindividudesprésd’havermenjat.S’obtenenels resultatsdelataulasegüent:
Representagràficamentaquestsvalors(enlamateixaescalavertical,sensetenirencompteladiferènciad’unitats)icontestaalespreguntessegüents:
a)¿Podenconsiderar-senormalselsvalorsdeglucèmia?
b)Quinaéslamalaltiamésfreqüentrelacionada ambvalorselevatsdeglucèmia?
c)Quinafunciótélainsulina?Ons’elabora?
d)Comregulal’organismeelsnivellsdeglucèmia?
e)Comacumulenelsteixitsorgànicslesreserves deglucosa?Permitjàdequinsprocessosbioquímics? Ons’acumulapreferentmentlaglucosa?
f)Elsprocessosfisiològicsalsqualsfanreferència elsexperimentsanteriorssónpropisdelsorganismes animals.Quinessónlesestratègiesdelesplantesen relacióamblaglucosa?Contestaalespreguntesde l’apartat e) enrelacióambelsvegetals.
1.Els gèrmens
2.La reproducció asexual
3.La reproducció sexual
4.Els cicles biològics
5.Els processos embriològics
6.El desenvolupament en els animals
7.El desenvolupament en els vegetals
8.La coordinació reproductora
Estructura cel·lular (en fals color) vista al microscopi electrònic, en què destaca la cromatina (en vermell) integrada per proteïnes i per l’ADN, la molècula que conté la informació hereditària (5000x).
Malgrat el que es va creure i acceptar durant segles, la generació espontània dels organismes no existeix, i la vida sempre procedeix de la vida.
La vida es perpetua mitjançant la reproducció, funció vital que augmenta el nombre de cèl·lules o d’organismes. La reproducció és una de les propietats essencials dels éssers vius, perquè, com que tots els organismes moren, cal que es reprodueixin per garantir la supervivència de les espècies. La reproducció es manifesta a escala molecular, cel·lular i d’organisme. La síntesi d’una molècula d’ADN idèntica a una altra s’anomena replicació, i és el procés previ a qualsevol forma de reproducció.
Veieu aquest ou? És amb això que hom desfà totes les escoles de teologia i tots els temples de la Terra.
Els gèrmens són parts del cos d’organismes pluricel·lulars que, mitjançant un creixement posterior, són capaços de transformar-se en nous individus. Aquest significat del terme germen és el que usem aquí. Tanmateix, el mot germen és polisèmic i pot voler dir altres coses. En les ciències biosanitàries, amb el terme germen es designa el microbi o microorganisme que pot causar una malaltia, una fermentació, etc., i fins i tot s’usa com a sinònim de qualsevol microorganisme. En botànica, la paraula germen també identifica l’embrió, és a dir, la part embrionària d’una llavor.
Els gèrmens, que poden ser unicel·lulars o pluricel·lulars, es caracteritzen per la seva menudesa, que n’afavoreix la producció i la dispersió; per ser produïts en grans quantitats, cosa que n’assegura la supervivència, i pel fet que sovint estan carregats de matèria de reserva nutritiva per tal de facilitar les primeres fases del desenvolupament.
Hi ha dos tipus de gèrmens: uns que són capaços d’originar un nou individu per ells mateixos i uns altres que necessiten fusionarse amb un altre germen de naturalesa diferent. En el primer cas, tenim la reproducció asexual, i en el segon, la reproducció sexual. Per tant, reproducció no sempre és sinònim de sexualitat.
Tots dos tipus de reproducció són freqüents en molts organismes (en nombrosos animals i en la major part dels vegetals superiors) es presenten de manera successiva en els individus de l’espècie, en fases successives que s’alternen.
Esquema de la reproducció asexual.
Fragment, espora, etc. Creixement
Un sol germen dóna lloc, per creixement posterior, a un individu adult.
Gàmeta masculí
Dos gèrmens
Gàmeta femení
Unió o fecundació
Creixement
Nou organisme
Els dos gàmetes s’han d’unir per originar, per creixement posterior, el nou individu.
Esquema de la reproducció sexual.
Les espores són gèrmens capaços d’originar, per divisió, un nou individu. Les espores, que habitualment són unicel·lulars, si bé en alguns fongs poden ser pluricel·lulars, s’originen als esporangis mitjançant l’esporulació. Les espores es produeixen en gran quantitat i, gràcies a la seva ínfima massa, la seva gran resistència i al fet de no haver de fusionar-se amb cap altre germen, constitueixen un mètode molt eficaç de propagació. L’esporulació és freqüent en els protoctistos, els fongs i les plantes superiors.
En la divisió o escissió primària, un organisme progenitor es divideix longitudinalment o transversalment en dues parts aproximadament iguals, cadascuna de les quals originarà un nou individu semblant al progenitor. És la forma de reproducció més generalitzada en els bacteris i en els protoctistos, però és molt poc freqüent en els animals.
La gemmació és una divisió desigual d’un organisme. A partir d’una zona delimitada del progenitor (gemma), creix un nou individu. De vegades, les gemmes no es desprenen i originen colònies amb un gran nombre d’individus, tal com succeeix en el cas d’alguns coralls i gorgònies (animals celenterats). La reproducció per gemmació és freqüent en diversos grups de protoctistos i en els llevats. Així mateix, està força estesa entre alguns grups del regne animal, com ara les esponges, els briozous, etc.
La multiplicació vegetativa és un tipus de reproducció asexual molt freqüent en els vegetals i que coexisteix amb la reproducció sexual típica (amb formació de flors i llavors). Es fa mitjançant propàguls, que són aquelles parts d’una planta, com ara una tija, un tubercle, un bulb, etc., que per divisió i creixement donen lloc a una planta nova, genèticament idèntica a la progenitora. La multiplicació vegetativa es basa en el fet que moltes cèl·lules vegetals són totipotents, és a dir, no especialitzades de forma irreversible.
Diferents exemples de reproducció asexual. Alguns d’aquests tipus de reproducció són emprats sovint en els vegetals per a la multiplicació vegetativa.
a) L’hidra, un celenteri d’aigua dolça, es reprodueix per gemmació.
b) Una colònia de corall vermell està formada per un conjunt d’individus o pòlips units entre si i originats de manera asexual.
c) Estoló de maduixera.
Els estolons són tiges de creixement horitzontal que arrelen i originen noves plantes.
d) Tubercle de patata.
La patata és un tubercle o tija subterrània carregada de substàncies de reserva.
A la superfície s’observen els ulls, on es troben les gemmes laterals. En el cultiu de la patata, es fan servir fragments del tubercle que continguin algun ull.
e) Esqueix de gerani.
L’esqueix és un fragment d’una tija aèria que, una vegada introduït a la terra, hi arrela i origina una nova planta.
La reproducció asexual
• Els investigadors que estudien l’origen i l’evolució de la vida afirmen que va ser la primera modalitat de reproducció a aparèixer. Es calcula que això va succeir fa aproximadament uns 3500 milions d’anys, quan es va iniciar el desenvolupament dels primers organismes procariotes.
• Està lligada a la mitosi, un tipus de divisió cel·lular que origina cèl·lules que tenen el mateix nombre de cromosomes que els que tenia la cèl·lula progenitora.
• Només necessita un progenitor.
• Sovint les cèl·lules que en són agents no tenen cap tret característic que les diferenciï de les altres cèl·lules de l’organisme.
• És un sistema reproductor molt simple i rendible: per reproduir-se asexualment, els organismes no han de fer una despesa important de matèria i d’energia (si més no, en comparació de la reproducció sexual).
• Els individus que origina són genèticament idèntics (formen un clon) i tenen, per tant, la mateixa combinació de gens.
• No possibilita la recombinació de gens i de caràcters; per tant, no afavoreix la variabilitat necessària per a l’evolució.
• Permet un ràpid creixement del nombre d’individus i facilita l’explotació de recursos i, per tant, l’adaptació ambiental.
• Les seves principals modalitats són l’esporulació, la bipartició i la gemmació.
La reproducció sexual
• Va aparèixer molt més tard que la reproducció asexual. Les restes fòssils indiquen que es va desenvolupar fa uns 1500 milions d’anys, és a dir, amb l’aparició dels eucariotes, que són els únics éssers vius que realitzen la mitosi.
• Està lligada a la meiosi, divisió cel·lular que implica la formació de cèl·lules haploides (els gàmetes) i requereix fecundació, la qual restableix el nombre de cromosomes característic de l’espècie.
• Gairebé sempre es necessiten dos progenitors.
• Són necessàries unes cèl·lules especials (reproductores, germinals o haploides), diferents de la resta de cèl·lules del cos (cèl·lules somàtiques o diploides).
• És un sistema reproductor complicat i requereix una notable despesa de matèria i d’energia per originar les cèl·lules reproductores i perquè aquestes es trobin i fusionin.
• Els individus que origina són genèticament diferents i cadascun té una combinació pròpia, gairebé única, de gens.
• Facilita la recombinació dels gens i dels caràcters dels progenitors; per tant, afavoreix la variabilitat necessària per a l’evolució.
• La reproducció sexual biparental, la més característica, presenta dues alternatives: la partenogènesi (desenvolupament d’un ou sense fecundar) i l’hermafroditisme, amb òrgans masculins i femenins en el mateix individu.
Molts animals i vegetals tenen la capacitat de reconstruir els teixits i els òrgans que han patit lesions. Un bon exemple és la cicatrització de les ferides. La regeneració és freqüent en els animals. Un trosset del cos d’una planària (cuc freqüent a les aigües dels rius i llacs), sempre que no sigui massa petit i es conservi en aigua en bones condicions, ben aviat tornarà a adquirir la forma d’un individu sencer, regenerant nous teixits i òrgans.
Algunes espècies d’estrelles de mar poden regenerar una estrella completa a partir d’un braç tallat, sempre que aquest conservi una porció del disc central. Alguns insectes, crustacis i aranyes regeneren els apèndixs (antenes, peces de l’aparell bucal, etc.) que han perdut. Diversos amfibis i rèptils poden regenerar la cua i les potes. En alguns animals, el poder de regeneració es relaciona amb la facultat de desprendre’s espontàniament d’algunes parts del cos amb finalitats defensives. El procés s’anomena autotomia, i el porten a terme, per exemple, algunes sargantanes. Quan una sargantana és retinguda per la cua per un depredador, perd la cua i s’escapa.
Regeneració d’un braç en una estrella de mar.
5.1. Explica quines diferències hi ha entre divisió cel·lular, replicació i reproducció dels organismes. En quins organismes la divisió cel·lular equival a la reproducció? Explica la funció de la mitosi i de la meiosi amb relació a la reproducció.
5.2. Quins orgànuls cel·lulars es reprodueixen de manera autònoma? Quina explicació es dóna a aquest fet?
5.3. Defineix el terme germen i explica les diferències entre espora i propàgul
5.4. Indica amb quin tipus de reproducció asexual estan relacionats els termes tubercle, esporangi, gemma i propàgul. Posa’n exemples amb relació a l’agricultura.
5.5. Defineix el concepte de poder de regeneració i d’autotomia i posa’n exemples concrets.
5.6. Digues quina mena de gèrmens intervenen en els tipus de reproducció següents: a) multiplicació vegetativa; b) esporulació; c) divisió desigual.
La reproducció sexual requereix que dues cèl·lules reproductores, o gàmetes, de sexe diferent, s’uneixin en el procés de la fecundació per formar una cèl·lula ou o zigot. En els organismes pluricel·lulars, aquest procés donarà origen, després del desenvolupament embrionari (per mitosi i diferenciació cel·lular), a un nou individu.
En la reproducció sexual, la formació dels gàmetes (gametogènesi) està lligada a un tipus especial de divisió cel·lular (meiosi) que origina cèl·lules amb un contingut genètic diferent de l’inicial. La meiosi atorga als organismes amb reproducció sexual una font inesgotable de recombinació genètica i, per tant, de creació de nous genomes, amb unes grans possibilitats de variabilitat i plasticitat evolutiva.
La reproducció sexual és complicada, lenta i malbaratadora. Sovint requereix més temps i més consum de matèria i d’energia que la reproducció asexual, ja que cal que els dos individus de la parella reproductora s’apropin, es reuneixin i coordinin les seves activitats per obtenir descendència. Aquest alt cost de la reproducció sexual està clarament compensat per la gran variabilitat que introdueix en les espècies.
La divisió cel·lular és el procés mitjançant el qual les cèl·lules originen altres cèl·lules semblants. Hi ha dos tipus de divisió cel·lular: la mitosi, que origina cèl·lules amb el mateix nombre de cromosomes que la cèl·lula progenitora, i la meiosi, que dóna lloc a cèl·lules amb la meitat de cromosomes que la progenitora.
En els organismes unicel·lulars, la divisió cel·lular és equivalent a la reproducció de l’organisme, mentre que en els pluricel·lulars és la base perquè es porti a terme alguna de les diferents modalitats de reproducció.
a) Posta d’ous de papallona. b) Posta d’ous de granota comuna.
Els gàmetes
• Són cèl·lules haploides que s’originen per meiosi.
• Són sempre unicel·lulars.
• Es formen en uns òrgans especials, les glàndules sexuals, que en els animals s’anomenen gònades i en els vegetals gametangis
• Quan els gàmetes són iguals, es parla d’isogàmia. És més freqüent en les algues i altres protoctistos.
• Quan els gàmetes són diferents, es parla d’anisogàmia. Es distingeixen dos tipus de gàmetes:
– Microgàmeta (anomenat masculí i petit).
–En els metazous, s’anomena espermatozoide. Té un nucli gran, poc citoplasma i és mòbil (disposa d’un llarg flagel). S’origina als testicles.
–En les plantes, s’anomena anterozoide o espermatozoide. S’origina als anteridis.
– Macrogàmeta (anomenat femení i gran).
–En els metazous, s’anomena òvul. Té un citoplasma voluminós, ja que emmagatzema substàncies de reserva, i és immòbil. S’origina als ovaris.
–En les plantes, s’anomena ovocèl·lula o oosfera. S’origina als arquegonis.
En la major part dels organismes amb reproducció sexual, hi ha individus femella o de sexe femení ($), amb glàndules sexuals femenines, i individus mascle o de sexe masculí (%), amb glàndules sexuals masculines. Són, per tant, organismes unisexuals, o mascles o femelles. El conjunt de diferències morfològiques i de comportament entre mascles i femelles rep el nom de dimorfisme sexual.
En algunes espècies, els individus són hermafrodites o bisexuals, és a dir, tenen glàndules sexuals femenines i masculines.
En els hermafrodites, l’autofecundació (unió d’un gàmeta femení amb un de masculí produïts pel mateix individu) és rara en comparació de la fecundació encreuada (unió de gàmetes procedents d’individus hermafrodites diferents). Alguns hermafrodites poden actuar com a mascle o com a femella. Els organismes anomenats hermafrodites en el temps són successivament mascles o femelles (per exemple, els coneguts peixos d’aquari anomenats «platis» i «xifus»).
Les flors de les fanerògames són sovint hermafrodites, ja que contenen òrgans femenins i masculins: carpels i estams. No obstant això, també existeixen flors unisexuals, és a dir, només amb carpels o només amb estams. Les espècies monoiques, com ara els pins, tenen flors masculines i femenines en el mateix individu, mentre que en les espècies dioiques, com ara la palmera de dàtils, existeixen individus femelles amb flors femenines (amb carpels) i individus mascles amb flors masculines (amb estams).
a) Mascle. b) Femella.
Dàfnia o puça d’aigua dolça vista al microscopi. Aquest petit crustaci pot reproduir-se per partenogènesi. En aquest cas, la dàfnia, sense ser fecundada, pon ous que maduren i es desclouen en la cambra incubadora de la mare (26x).
La partenogènesi (etimològicament, ‘origen virginal’) és una variant de la reproducció sexual en la qual l’embrió es pot desenvolupar a partir d’un òvul sense fecundar; és a dir, la femella, per ella mateixa, pot deixar descendència.
La partenogènesi és freqüent en determinats grups d’animals, per exemple en algunes espècies de peixos i en alguns nematodes, crustacis, insectes, amfibis i llangardaixos del desert. En algunes espècies, com ara alguns insectes, la partenogènesi és l’únic sistema de reproducció conegut i no existeixen individus mascles.
En altres casos, tal com passa en les dàfnies, la partenogènesi és cíclica i les generacions partenogenètiques alternen amb generacions de reproducció sexual amb fecundació. Sovint hi ha una relació amb el cicle de les estacions.
Grans de pol·len de diverses espècies vistos a través del microscopi electrònic de rastreig.
El pol·len s’origina a les anteres dels estams i està format per corpuscles microscòpics, els grans de pol·len. Cada gra conté la cèl·lula reproductora masculina dels vegetals superiors, equivalent a l’anterozoide de les molses i les falgueres i a l’espermatozoide dels metazous.
Quan el gra de pol·len és madur, està format pel següent:
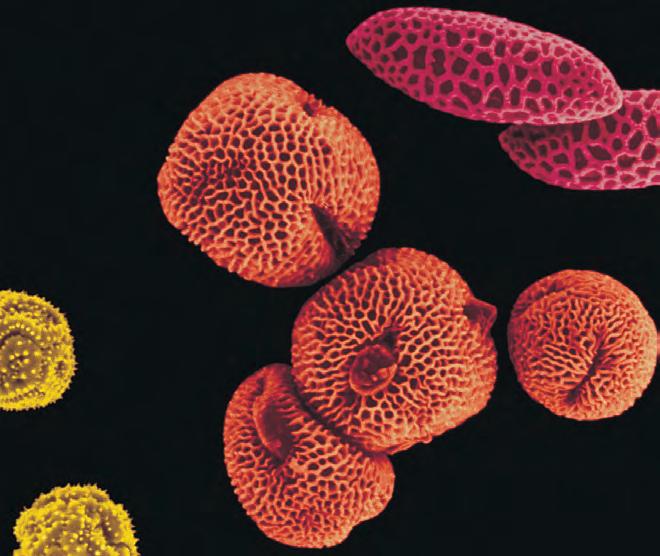
– una doble membrana molt resistent, amb una forma i una ornamentació externa característiques de cada espècie;
– una cèl·lula vegetativa, que originarà el tub pol·línic durant la germinació del gra de pol·len;
– una cèl·lula generativa, que originarà cèl·lules espermàtiques, una de les quals fecundarà l’ovocèl·lula.
L’estudi del pol·len i de les espores, palinologia, té molta importància en la sistemàtica vegetal i en paleobotànica (estudi de les plantes fòssils a partir de la determinació del pol·len contingut en sediments i roques).
• Pol·linització directa o autopol·linització
És pròpia de les plantes autògames, en les quals el pol·len cau a l’estigma de la mateixa flor. És el cas de les flors hermafrodites, en què els estams i els pistils maduren al mateix temps. El pèsol i el blat són exemples de plantes autògames.
• Pol·linització indirecta o creuada És pròpia de les plantes al·lògames, en les quals el pol·len d’una flor cau a l’estigma d’una altra flor. El transport del pol·len a través del vent (pol·linització anemòfila) és una característica de les plantes amb flors poc vistoses, que produeixen enormes quantitats de pol·len de grans petits i lleugers. El transport del pol·len a través dels insectes (pol·linització entomòfila) és propi de les plantes amb flors vistoses, aromàtiques i ensucrades, que atreuen els insectes.
L’estudi de la quantitat de pol·len contingut a l’aire té un gran interès en agricultura (permet fer la previsió de collites de determinats cultius, com ara l’olivera, la vinya, etc.) i en medicina, ja que nombroses al·lèrgies són causades pel pol·len i cal conèixer les èpoques de pol·linització de determinades plantes.
La pol·linització, o transport dels grans de pol·len des dels estams fins a l’estigma, és el pas imprescindible previ a la fecundació i a la reproducció de les plantes superiors.
En arribar a l’estigma de la flor, el gra de pol·len germina: la cèl·lula vegetativa origina el tub pol·línic (una mena d’òrgan de copulació), que progressa per l’estil fins a arribar al sac embrionari, que conté l’ovocèl·lula. Una de les cèl·lules reproductores (anterozoides) contingudes en el gra de pol·len es fusiona amb l’ovocèl·lula i origina un zigot.
a) Núvols de pol·len de pi aixecats pel vent. Pol·linització anemòfila.
b) Insectes pol·linitzant una flor. Pol·linització entomòfila.
Gra de pol·len
Tub pol·línic Nuclis espermàtics
Gra de pol·len
La formació del tub pol·línic i la fecundació.
Laflorésl’aparellreproductordelsvegetalssuperiors, espermatòfits o fanerògames .Unaflortípicaestàformada perdiferentstipusdefullesmodificades,disposadesenverticilsalvoltantd’unapetitatija.Elsdosverticilsexterns, formatspelssèpalsielspètals,sónestèrils;mentrequeelsdosinterns,formatspels estams iels carpels ,són fèrtils iprodueixenelsgàmetes.
• Calze .Éselverticilmésexternformatpelssèpals,que,situatsalabasedelaflor,ambfreqüènciasóndecolor verd.Protegeixelsòrgansinternsdelaflormentreésponcellaireforçalabasedelaflor.
• Corol·la .Estàformadapelspètals,elsqualsgeneralmenttenencolorsvistosos,iunesglàndules,elsnectaris,que secretenelnèctar.Aquestestàformatperlíquidsensucratsisubstànciesoloroses.Laprincipalfunciódelspètalsés atreureelsinsectespol·linitzadors.
• Androceu .Éselconjuntd’estamsencarregatsdeproduirpol·len.Cadaestamestàformatperunfilamentprimi l’ antera ,quecontéelssacspol·línicsonesformaelpol·len.Laforma,lamida,laposicióielnombredelsestams sóncaràctersqueesfanservirenlaclassificaciódelesplantesambflors.
• Gineceuopistil .Éselconjuntdecarpelsqueoriginalescèl·lulesreproductoresfemenines.Elscarpelsestroben alapartcentraliinternadelafloripodenaparèixerlliuresofusionats.Enunpistiltípic,espodendistingir:una partinferior,l’ ovari ,quecontéelsòvulsoprimordisseminalsiqueestransformaràenelfruitsiésfecundat;un tubprimqueésunaprolongaciódel’ovari,l’ estil ,il’ estigma ,partsuperiorieixampladadel’estilquerepels gransdepol·len,elsretéin’afavoreixlagerminació.
Enlesplantes gimnospermes (delgrec gymnós ,quevoldir‘nu’,‘descobert’,i spérm a,quevoldir‘llavor’),elsòvuls delesflorsestrobensobrelasuperfícielliuredelscarpelsplans.Uncopfecundatselsòvuls,lesllavorsrestenal descobertinoespotparlar,pròpiament,defruit,encaraquel’aspectedelespinyesdelpisiguisemblantald’un fruit.Lesgimnospermesmésabundantssónlesconíferes,comaraelspins,quetenenflorsunisexuals.
• Florsmasculines .Neixenalabasedelsbrotsdel’any;sónpetites,còniques,decolorverdós.Esprodueixenen gransquantitatsiapareixenengrupsd’unesquantesdesenes.
•Flors femenines .S’originenal’extremd’algunsbrotsdel’anyenformadepetitespinyesviolàcies,formadesper esquamesimbricades,cadascunadelesqualsésunaflorrudimentàriaqueportadosòvulsdiminuts.
Lesflorsdelesplantes angiospermes (delgrec aggeion ,quevoldir‘receptacle’,i spérma ,quevoldir‘llavor’) presentenunaextraordinàriavarietatdeformes,sovintresultatd’unaadaptacióaltipusdepol·linització.
Florsmasculinesdepi Florsfemeninesdepi
3.3. La fecundació en els animals
En nombrosos grups d’animals els gàmetes (espermatozoides o òvuls) són produïts en grans quantitats i expulsats al medi extern, on s’han de trobar i fusionar per formar el zigot. Es diu que la fecundació és externa. Els animals amb aquest tipus de fecundació no copulen. En la fecundació interna, els espermatozoides són transferits de l’aparell genital masculí al femení, tot evitant la pèrdua de cèl·lules reproductores o la seva dessecació en els animals de vida continental. En les aus, per tal de fecundar la femella, el mascle, desproveït de penis, aplica el seu orifici cloacal contra el de la femella. Per facilitar la fecundació interna, els mascles d’alguns animals (com ara els mamífers, els insectes, els selacis, etc.) tenen un òrgan copulador, el penis, que introdueix els espermatozoides en l’aparell genital de la femella.
En alguns parts, neixen dues o més criatures, els bessons. D’aquests, n’hi ha alguns, els bessons bivitel·lins, que procedeixen de dos o més òvuls que han madurat de manera simultània i han estat fecundats per espermatozoides diferents. Els zigots originats seran diferents, es transformaran en embrions diferents i donaran lloc a individus que tindran la mateixa semblança que els germans normals i que poden ser del mateix sexe o de sexe diferent. Dit d’una altra manera, són germans que han coincidit en el temps. Els bessons univitel·lins, en canvi, procedeixen de la fecundació d’un únic òvul per un únic espermatozoide, són genèticament idèntics i del mateix sexe. El zigot originat iniciarà la segmentació i, en un moment determinat, les seves cèl·lules formaran dos grups que continuaran independentment el seu desenvolupament i donaran lloc a dos embrions. Els bessons univitel·lins són, en realitat, clons.
Els siamesos són bessons univitel·lins que neixen units físicament perquè els seus embrions no s’han separat del tot. Tenen la mateixa constitució cromosòmica i, per tant, són genèticament idèntics.
Un sol nadóBessons bivitel·linsBessons univitel·lins
Cada òvul és fecundat per un espermatozoide 1 òvul 1 espermatozoide 2 òvuls 2 espermatozoides 1 òvul 1 espermatozoide
Primera divisió cel·lular
Divisions successives
Al cap de nou mesos, s’ha desenvolupat un nadó des de cada grup de cèl·lules
La semblança entre aquests bessons no és més gran que la que hi pot haver entre germans o germanes, ja que provenen d’òvuls i espermatozoides diferents.
Aquests bessons són idèntics i del mateix sexe, ja que provenen del mateix òvul i del mateix espermatozoide.
Quimeres
Les quimeres són individus que procedeixen de la fusió de dos embrions diferents. Una quimera és, per dir-ho així, un únic cos format amb fragments de dos germans. La il·lustració de sota representa Maria Sabina, una nena que visqué a la missió de Matuna (Colòmbia) en el segle XVIII. El seu pare mulat degué transmetre informació diferent, quant al color, a cadascun dels embrions originaris.
La gran majoria dels animals són ovípars, és a dir, la seva vida embrionària es desenvolupa a l’interior d’un ou, i ponen els ous en el medi en el qual viuen.
Molts ovípars abandonen la posta d’ous, mentre que d’altres retenen els ous en el cos (a l’oviducte) durant el seu desenvolupament. Llavors, els embrions s’alimenten a partir de la reserva nutritiva (vitel) emmagatzemada als ous, i quan s’han desenvolupat del tot fan obrir l’ou i surten a l’exterior amb les restes de la closca. Aquests animals són els ovovivípars, com ara alguns invertebrats (alguns insectes, mol·luscos, etc.) i alguns peixos i rèptils.
En els animals vivípars (naixement de cries vives), l’embrió es desenvolupa a l’úter matern i obté l’aliment directament de la mare. És la reproducció pròpia de la major part dels mamífers.
• Peixos
Ovípars, ovovivípars i alguns vivípars. Fecundació externa. Ponen grans quantitats d’ous, sense proteccions, per assegurar la descendència. Desenvolupament indirecte amb fases larvàries (alevins).
• Amfibis
Ovípars. Fecundació externa. Ponen a l’aigua molts ous sense protecció. Desenvolupament indirecte amb metamorfosis i larves aquàtiques molt diferents de com són els adults.
• Rèptils
Ovípars, ovovivípars i alguns vivípars. Fecundació interna. Ponen sempre a terra i no fan gaires ous, els quals tenen abundant matèria nutritiva i una closca protectora. Desenvolupament directe sense fases larvàries.
• Ocells
Ovípars. Fecundació interna. Ponen pocs ous amb abundant matèria nutritiva i closca protectora. Incuben els ous en nius. Desenvolupament directe. Tenen cura de les cries.
• Mamífers
– Monotremes (ornitorinc)
Ovípars. Tenen cura de les cries i les alimenten amb llet.
– Marsupials (cangur)
Vivípars. Neixen immadurs i han de completar el desenvolupament en una bossa situada a l’abdomen de la mare, on es troben les mamelles.
– Placentaris
Vivípars. La major part dels mamífers actuals. L’embrió es desenvolupa a l’úter matern, on és alimentat mitjançant la placenta.
Els bancs d’esperma, la punció ovàrica, la incubació in vitro i la micromanipulació són, entre altres, algunes de les tècniques que actualment permeten aconseguir la fecundació i, per tant, l’embaràs quan aquest no és possible de manera natural.
Tècniques de reproducció assistida
En un nombre de casos estadísticament important, la funció reproductora humana resulta obstaculitzada o impedida per motius diferents. Per intentar solucionar aquests casos, des de fa algunes dècades es fan servir les anomenades tècniques de reproducció assistida, que tracten d’afavorir la fecundació, és a dir, la trobada i fusió de l’òvul i l’espermatozoide en aquells casos en què no es produeix de manera natural.
La inseminacióartificial i la fecundació in vitro i transferència d’embrions són les tècniques de reproducció assistida que tenen en comú la manipulació de gàmetes al laboratori.
En la inseminació artificial, l’esperma és introduït, mitjançant un catèter adaptat a una xeringa, a l’interior de l’aparell genital femení, de manera que la possible fecundació tingui lloc a l’interior del cos de la dona.
Les etapes de la fecundació in vitro, tal com és possible avui dia, són les següents:
– Obtenció de les cèl·lules reproductores. La dona és sotmesa a un tractament hormonal inductor de l’ovulació i, mitjançant ecografies de l’ovari, s’estudia la mida i l’estat de maduració dels fol·licles ovàrics. L’esperma s’obté per masturba-
Mètode habitual
Preparació de la mostra
Transferència embrionària
Mètode per injecció de l’espermatozoide en l’òvul (ICSI)
Injecció d’un espermatozoide en l’ovòcit
per a la injecció de l’espermatozoide
Cultiu d’espermatozoides i ovòcit (fecundació)
ció, és observat al microscopi, tractat i concentrat per assegurar-ne la capacitat fecundadora dels espermatozoides. Es poden fer servir gàmetes propis o de donant. En el cas del gàmeta masculí, es pot recórrer a un banc d’esperma, els quals funcionen des de fa temps. En el cas dels òvuls, en molts països la donació presenta problemes legals.
– Retirada dels ovòcits. Poc abans de l’ovulació (esclat dels fol·licles), es realitza l’obtenció dels ovòcits, mitjançant una punció ovàrica i l’aspiració del contingut dels fol·licles. Els ovòcits són observats al microscopi, incubats i cultivats en un medi adequat per a la futura fecundació.
– Inseminació o barreja dels ovòcits amb els espermatozoides. Es realitza per facilitar la fecundació, la qual es comprova al microscopi. En l’actualitat, l’espermatozoide pot ser injectat, mitjançant micropipetes, al citoplasma de l’ovòcit. Els embrions originats s’observen al microscopi i es cultiven en un medi adequat.
– Preparació de l’endometri. La dona rep un tractament hormonal amb progesterona que prepara la paret de l’úter per a la implantació dels embrions.
– Transferència d’embrions. Quan els embrions estan en la fase de 4 o 8 cèl·lules (aproximadament, als 2 o 3 dies de la fecundació), mitjançant un catèter són dipositats suaument a la cavitat uterina. Uns 12 dies després de la transferència d’embrions, es fa la prova de l’embaràs si no s’ha produït la menstruació. Si s’obtenen més embrions dels necessaris, es congelen per a transferències posteriors, en cas que la tècnica no doni resultats positius. En alguns països, es permet la transferència d’embrions a una dona diferent de la que ha aportat l’òvul («mares de lloguer»). Encara que es produeixen avenços en les tècniques, els resultats positius de la fecundació in vitro oscil·len entre el 20 i el 30%.
Una espora és un germen asexual. En canvi, un gàmeta necessita fecundar-se –és a dir, unir-se amb un altre gàmeta de sexe contrari– per originar un zigot i desenvolupar-se.
5.7. Copia les frases següents i indica al costat de cadascuna si és certa o falsa:
a) Les flors sempre són hermafrodites.
b) Espermatozoide és sinònim d’anterozoide.
c) Els animals hermafrodites sempre s’autofecunden.
d) Les gònades i els gametangis són glàndules sexuals.
e) Hermafrodita és sinònim de bisexual.
f) L’ovocèl·lula és el microgàmeta dels vegetals.
g) L’òvul és el macrogàmeta dels animals.
h) La reproducció asexual i la sexual són excloents.
5.8. Sovint, els organismes hermafrodites presenten estratègies per tal d’evitar l’autofecundació. Explica alguna d’aquestes estratègies en les plantes i en els animals.
5.9. Defineix el concepte de dimorfisme sexual i explica com es concreta en l’espècie humana aquest fenomen.
5.10. Digues què és la palinologia i explica les seves aplicacions.
5.11. Quines fases inclou el cicle sexual de la major part dels mamífers? Què s’entén per zel?
5.12. Indica quins avantatges i quins desavantatges tenen l’hermafroditisme i la partenogènesi en relació amb la reproducció sexual amb dos progenitors.
5.13. Explica les relacions, reproductora i nutritiva, entre els insectes pol·linitzadors i les plantes que pol·linitzen.
5.14. Què és la copulació i en quina forma de reproducció és necessària? Quins òrgans la porten a terme?
5.15. Explica quines són les diferències fonamentals, pel que fa a la fecundació i a la protecció de l’embrió, entre els animals ovípars, els ovovivípars i els vivípars.
5.16. Quin procés fonamental es produeix durant la fecundació?
5.17. Explica quines diferències genètiques i de sexe hi ha entre els bessons, segons siguin univitel·lins o bivitel·lins.
5.18. Fes les consultes adequades i explica l’etimologia dels termes partenogènesi, hermafrodita, androceu i gineceu.
5.19. Copia i relaciona cada element del primer grup amb l’element corresponent del segon grup: Primer grup: macrogàmeta, pol·len, escissió, microgàmeta, glàndula sexual, cèl·lula ou, anisogàmia, multiplicació vegetativa, mitosi, fecundació.
Segon grup: espermatozoide, propàgul, reproducció cel·lular, gàmetes diferents, oosfera, fusió de gàmetes, estam, divisió, gametangi, zigot.
5.20. Indica en quin ordre es produeixen els processos següents en un animal que es reprodueix sexualment: desenvolupament embrionari, replicació de l’ADN, fecundació, formació de gàmetes.
5.21. Defineix els termes androceu, fanerògama, anemògama, angiosperma, corol·la, poncella, gimnosperma i monoica, relacionats amb el tipus de reproducció de les plantes.
5.22. Digues el nom de dos gèrmens asexuals i de dos gèrmens sexuals.
En la reproducció asexual, tots els descendents són clònics, és a dir, genèticament idèntics.
En canvi, la reproducció sexual comporta la mescla dels gens dels progenitors i, per tant, la diversitat genètica.
5.23. Quines són les característiques de les flors de les plantes que n’afavoreixen la pol·linització per part dels insectes?
5.24. Contesta a les preguntes següents:
a) A quin òrgan reproductor pertany l’antera?
b) Quina és la funció de l’antera?
c) Què és l’androceu d’una flor?
d) A quina part de la flor pertany el pistil?
e) Quin gàmeta conté el gra de pol·len?
f) Com arriba aquest gàmeta a fusionar-se amb el gàmeta del sexe contrari?
g) Com es transporten els grans de pol·len als òrgans femenins de la flor?
Els gèrmens asexuals originen per si sols un nou organisme. En canvi, els gàmetes o gèrmens sexuals s’han d’unir o fecundar. D’aquesta fecundació en resulta una cèl·lula ou o zigot, que per desenvolupament posterior origina un nou individu adult.
5.25. Copia aquest text i completa’n els espais buits amb les paraules següents: molecular, haploides, embrionari, progenitora, replicació, zigot, gàmetes, meiosi, asexual, manté, regeneració i mitosi.
La … és la producció d’una molècula d’ADN idèntica a una altra i, a escala …, és el punt de partida de tota mena de reproducció.
La reproducció cel·lular que … constant el nombre de cromosomes és la …, procés en el qual es basa la reproducció … i el creixement i … de parts dels organismes pluricel·lulars.
La … és el tipus de divisió cel·lular en el qual es basa la reproducció sexual.
A partir de la meiosi, s’originen cèl·lules …, és a dir, amb la meitat de cromosomes que la cèl·lula … .
Per fecundació de dues cèl·lules reproductores, o …, s’origina la cèl·lula ou o …, que per desenvolupament … originarà un nou individu.
5.26. Digues a quin tipus de reproducció (sexual o asexual) fa referència cada una de les frases següents:
a) Està lligada a la meiosi.
b) Implica fecundació.
c) Implica la producció de cèl·lules haploides.
d) Origina individus genèticament idèntics.
e) És la més ràpida.
f) Implica mitosi i fecundació.
g) Afavoreix la variabilitat.
h) Va ser la primera a aparèixer en la història de la biosfera.
i) És exclusiva dels organismes superiors.
j) Està lligada a la mitosi.
k) Implica la participació d’un sol progenitor.
l) És la que consumeix menys matèria i energia.
Un cicle biològic és el conjunt de les etapes o fases en la vida d’un organisme. L’organisme neix, es desenvolupa, esdevé adult, es reprodueix i, finalment, mor. En els cicles biològics –com en qualsevol altre cicle–, s’arriba periòdicament a una situació semblant a la inicial.
Aquest conjunt d’etapes permeten que una generació substitueixi de manera adequada l’anterior, raó per la qual són necessaris uns mecanismes molt precisos en la reproducció que garanteixin que la dotació genètica de la nova generació sigui equiparable a la de l’anterior.
Les característiques dels cicles biològics dels éssers vius són un dels criteris per delimitar el regne al qual pertanyen. D’aquesta manera, els cicles més complets diferencien els regnes més complexos (les plantes, els animals i els fongs) dels altres dos (els protoctistos i, especialment, les moneres), que generalment tenen cicles biològics més senzills.
Els cicles biològics dels organismes inclouen, com hem vist en aquesta mateixa unitat, les dues formes bàsiques de reproducció (sexual i asexual) en diferents modalitats, que impliquen, fins i tot, l’alternança entre elles en alguns organismes.
4.1. La posició de la meiosi i el cicle biològic
La meiosi és una condició necessària per a les espècies amb reproducció sexual. Hi ha tres tipus d’espècies segons la posició de la meiosi: amb cicle biològic haplont, cicle diplont i cicle diplohaplont
En el cicle de tipus haplont, el zigot és la cèl·lula que experimenta la meiosi en dividir-se. Per tant, és l’única cèl·lula amb dos jocs de cromosomes. En aquestes espècies, els adults són haploides, és a dir, amb un únic joc de cromosomes. Aquest cicle biològic és propi d’organismes d’organització més primitiva, com ara fongs i algues. Probablement, s’ha conservat per l’avantatge que suposa que els individus haplonts puguin reproduir-se fàcilment en forma asexual, segons les condicions ambientals.
En el cicle biològic diplont, en canvi, la meiosi es fa en el moment de la formació dels gàmetes o gametogènesi. Els éssers humans i els animals en general en són exemples. Tot l’organisme adult està format per cèl·lules diploides. Només són cèl·lules haploides els espermatozoides i els òvuls. La selecció natural pot haver afavorit aquests cicles diplonts, perquè els zigots tenen dos jocs de cromosomes, dues còpies per a cada gen. Així, encara que es produeixi algun canvi en el material hereditari d’un dels progenitors, els zigots continuaran sent viables.
El cicle biològic diplohaplont combina els avantatges del cicle haplont amb els del diplont, ja que els organismes diplohaplonts tenen,
En els organismes amb reproducció sexual, la meiosi assegura el manteniment del nombre de cromosomes, tot evitant que es dupliqui a cada generació. La posició de la meiosi en el transcurs del cicle biològic de les espècies permet distingir organismes haplonts, diplonts i diplohaplonts.
En l’alternança de generacions hi ha una fase, la de l’esporòfit, que es reprodueix per espores (reproducció asexual), i una altra, la del gametòfit, que ho fa per gàmetes (reproducció sexual).
alternativament, adults de les dues menes. La meiosi es produeix durant el procés de formació d’espores, tot dividint el cicle biològic en dues fases, cadascuna de les quals és representada per un adult independent. La generació haploide, el gametòfit, té reproducció sexual, mentre que la generació diploide, l’esporòfit, es reprodueix per espores obtingudes de la meiosi. Aquest cicle diplohaplont, que alterna generacions diferents, és propi de les algues, les plantes superiors i molts fongs.
Gàmetes n n n
Adult haploiden
Fecundació
Eixam d’abelles.
CICLE DIPLOHAPLONT
Zigot 2n
Fecundació
Zigot 2n 2n
Gàmetes n n
Adult diploide2n
Generació de reproducció asexual
Adult 2n
Esporòfit
Espora n Cèl·lula esporogènica 2n n
Gàmetes n Meiosi
Adult n Gametòfit
Generació de reproducció sexual
Tant entre les plantes com entre molts animals invertebrats, existeixen espècies que combinen la reproducció sexual amb l’asexual, sovint alternant dues o més generacions.
L’alternança de generacions (i, per tant, de reproducció) és present en animals com ara els tunicats, els hidrozous, els anèl·lids i els celenterats. Un exemple clàssic n’és la medusa aurèlia. Aquesta medusa produeix gàmetes que, en fecundar-se, originen una larva nedadora que acabarà fixada al fons i convertida en una mena de pòlip. Aquest pòlip es fragmenta i origina noves meduses. Per tant, tenen una fase de reproducció asexuada, per escissió o gemmació des d’un pòlip, que originarà meduses sexuades i completarà el cicle.
En els vegetals, l’alternança de les generacions és la norma i els cicles biològics sovint són més complicats. El cicle biològic de les falgueres és un bon exemple d’aquestes diferències. Les falgueres produeixen unes espores (haploides) que creixeran fins a formar una planteta haploide que s’anomena gametòfit. El gametòfit o protal·lus és la generació sexual de les falgueres. El gametòfit, tal com indica el nom, produeix gàmetes masculins i femenins, els quals, si aconsegueixen fusionar-se, originen de nou la planta adulta o esporòfit. L’esporòfit produeix espores que germinen i originen nous gametòfits. L’esporòfit és, doncs, la generació de reproducció asexual.
Les molses, les falgueres i les plantes superiors presenten alternança de generacions. D’esquerra a dreta, i de dalt a baix, alternança de generacions en una molsa (briòfit), en una falguera polipodiàcia i en una planta superior (angiosperma).
En cada cas, el desenvolupament relatiu de cada fase és diferent. A la molsa predomina el gametòfit, a costa del qual viu l’esporòfit, que és molt reduït. En canvi, a les falgueres les dues fases són independents, per bé que l’esporòfit és el més desenvolupat i aparent. Aquest predomini de l’esporòfit és encara més evident en les plantes superiors. En aquestes plantes, el gametòfit és microscòpic, viu a l’interior de la flor i està limitat al desenvolupament del tub pol·línic (gametòfit masculí) i a la divisió nuclear del sac embrionari (gametòfit femení).
AnteridiArquegoni
Espores
Esporòfit
Espora
Planta superior (angiosperma)
Sac embrionari madur amb 8 nuclis
Òvul fecundat
Ovocèl·lula
Gametòfit
Falguera
Esporangi
Esporòfit
Anterozoide
Anteridi Arquegoni
Protal·lus (Gametòfit)
Espora
Gametòfit masculí
Gametòfit femení
Tub pol·línic
Gra de pol·len
Nucli triploide de l’endosperma
Llavor
Cèl·lula mare de la megàspora
Planta jove
Flor
Grans de pol·len
Cèl·lula mare de la micròspora
Les algues, les molses i les plantes amb flors també tenen esporòfit i gametòfit. Però la fase que predomina no és la mateixa en tots els casos. Mentre que a les algues i molses predomina el gametòfit, aquest està més reduït a les falgueres, i encara més a les plantes superiors, on l’esporòfit està més desenvolupat que en cap altra.
Efectivament, les plantes amb flors segueixen un cicle biològic amb un gran predomini de l’esporòfit. La generació del gametòfit consisteix només en el tub pol·línic derivat de la divisió dels grans de pol·len i el sac embrional, i té poques cèl·lules, les quals sempre es troben
A més de la fase diploide (a), les falgueres tenen una fase haploide (b), més difícil de veure a la natura a (25x).
A les molses hi ha alternança de generacions. La generació asexual o esporòfit, representada per les típiques càpsules portadores d’espores (molt evidents en la fotografia), viu sobre el gametòfit i a expenses seves.
Els dicaris
Entre els fongs es dóna un fenomen biològic únic: la formació de dicaris. Després de la fecundació de les dues cèl·lules haploides diferents, els dos nuclis no es fusionen immediatament, sinó que es divideixen a mesura que la cèl·lula que els conté es va dividint. De fet, per creixement i divisió s’originen hifes dicariòtiques. En realitat, una bona part de les cèl·lules que constitueixen un rovelló o un altre bolet típic són cèl·lules dicariòtiques, amb dos nuclis.
sobre l’esporòfit; tot succeeix dins la flor. El gametòfit, microscòpic, sempre és un paràsit de l’esporòfit.
Els fongs presenten un cicle biològic una mica diferent. D’una banda, poden tenir una reproducció asexual, per mitjà d’espores. Però el que és més interessant de destacar és que també poden tenir una reproducció sexual, malgrat que és una mica diferent de la dels animals i les plantes. La raó de fons és que els fongs són organismes haploides, i només són diploides en una curta fase del cicle biològic. Els fongs fan espores haploides, les quals, si poden créixer, es transformen en les hifes, que són, per tant, haploides.
Dues cèl·lules d’hifes diferents poden fusionar-se (conjugació) per formar una cèl·lula diploide. Cal destacar que no s’han format gàmetes i que les dues cèl·lules que s’han fusionat són d’idèntic aspecte. Poc després, una divisió meiòtica forma de nou espores haploides i el cicle recomença.
Entre els protoctistos, hi ha una gran varietat de cicles biològics, alguns semblants als descrits en cadascun dels altres regnes. Fins i tot les amebes i algunes algues prescindeixen de la reproducció sexual. Això no és estrany si tenim en compte el fet que es tracta d’un regne que, en certa manera, reuneix organismes que no encaixen en cap dels altres quatre.
En les moneres (sense nucli), tot i que tenen comportaments que permeten intercanvis d’ADN, no hi ha fusió de cèl·lules, i, per tant, no es fa necessària la meiosi per recuperar la dotació de material genètic original. En aquest sentit, el seu cicle biològic és més simple.
5.27. Els organismes que es reprodueixen sexualment, com ho fan per mantenir constant el nombre de cromosomes? Per què no va augmentant a cada generació?
5.28. Una cèl·lula haploide, pot comportar-se com un gàmeta? I com una espora? Posa’n exemples.
5.29. Digues si un gametòfit d’una falguera fa meiosi per produir els gàmetes. Raona la resposta.
5.30. Suposem que s’ha trobat un organisme fins ara desconegut. Indica en què et fixaries per ubicar-lo en algun dels cinc regnes.
5.31. Quin avantatge suposa un cicle biològic diplont enfront d’un d’haplont? Per què no desapareixen els organismes haplonts?
5.32. En els animals, hi pot haver alternança de generacions? Posa’n algun exemple.
Una vegada format, el zigot d’un organisme pluricel·lular amb reproducció sexual es divideix, per mitosis successives, en dues cèl·lules i, després, en un gran nombre de cèl·lules, cadascuna de les quals té una funció concreta. La informació necessària per portar a terme aquesta extraordinària transformació es troba en els gens del zigot.
L’embriologia és la ciència biològica que estudia el desenvolupament del zigot, és a dir, la realització del programa genètic contingut a l’ADN de l’organisme. Cada cèl·lula conté totes les instruccions de l’organisme sencer. Per això, aquest programa genètic s’ha de comparar, més que amb els plànols d’un edifici, amb una cinta enregistrada que cal escoltar o veure només quan es demana una resposta específica a estímuls procedents del mateix programa o de l’exterior.
A mesura que l’embrió es desenvolupa, la major part de les seves cèl·lules s’especialitzen, és a dir, porten a terme funcions particulars. De vegades, l’especialització funcional va acompanyada d’una especialització estructural, és a dir, es modifica també l’aspecte de les cèl·lules, i quan és molt gran resulta irreversible. S’originen així els teixits, agrupacions de cèl·lules d’un organisme que cooperen entre elles en la realització d’una funció conjunta.
L’embriologia estudia tres processos: la proliferació cel·lular, la diferenciació cel·lular i la morfogènesi.
La primera fase, la proliferació cel·lular, implica un augment de la massa cel·lular per multiplicació del nombre de cèl·lules. L’inici del creixement, la seva velocitat, la localització, etc., tenen a veure amb l’expressió de la informació continguda a l’ADN.
La diferenciació cel·lular consisteix en una modificació de l’estructura i la funció de la cèl·lula, amb la formació de cèl·lules especialitzades. La diferenciació cel·lular suposa una variació respecte a altres cèl·lules veïnes i respecte al passat de la mateixa cèl·lula. Les cèl·lules especialitzades perden la capacitat de viure independentment: la diferenciació (o especialització) és un avantatge per a l’organisme, però no pas per a una cèl·lula individual. Atès que l’ADN de les cèl·lules d’un organisme (tret del de les cèl·lules sexuals) és el mateix i hi és present en la mateixa quantitat, la diferenciació ha de ser deguda a diferències en el funcionament del material genètic, és a dir, a funcions gèniques diferenciades.
La morfogènesi (gènesi de la forma) és el procés d’aparició de la forma de l’embrió, resultat de la diferenciació i del creixement harmònics. En una paraula, és el resultat de tots els canvis de desenvolupament que porten a la formació d’un òrgan o d’una part del cos. Els estudis genètics han revelat l’existència de compartiments de desenvolupament, és a dir, compartiments restringits a regions particulars de l’embrió. Les denominades mutacions homeòtiques són
Drosòfila amb mutació homeòtica (que, en aquest cas, té com a resultat la duplicació del segment toràcic portador de les ales).
En les primeres etapes del desenvolupament embrionari, les cèl·lules encara no s’han especialitzat i, per tant, conserven totes les seves possibilitats de desenvolupament. Aquestes cèl·lules totipotencials o cèl·lules mare són de gran interès per a la recerca mèdica tal com s’estudia a les unitats de genètica.
alteracions (mutacions) en els gens que regulen el desenvolupament dels teixits. D’aquesta manera, hi ha parts del cos que desenvolupen teixits que pertanyen a parts ben diferents: una pota en lloc d’una antena, per exemple.
A través d’aquests tres fenòmens essencials s’arriba al nombre i a la diversitat de cèl·lules que formen els organismes adults. Una mosca, per exemple, té prop d’un milió de cèl·lules, que pertanyen a unes 60 classes diferents. L’ésser humà en té uns 100 bilions, repartides en unes 200 classes diferents. A mesura que l’organisme va creixent, les noves cèl·lules s’ordenen en morfologies tridimensionals diferents, seguint una mena de programa genètic.
En última instància, cal buscar la clau del desenvolupament en els mecanismes d’expressió i d’activació dels gens. Moltes proves experimentals suggereixen que els contactes entre cèl·lules veïnes possibiliten interaccions químiques que poden activar o desactivar grups de gens.
Recentment, els experiments per originar l’ovella Dolly que han portat a la clonació de cèl·lules adultes especialitzades, i altres experiments que, al contrari, n’han aconseguit la reversió, permeten pensar que la diferenciació i l’especialització cel·lular no són fets irreversibles.
6.1. La segmentació
Les primeres etapes del desenvolupament embrionari s’inicien amb la segmentació del zigot en dues cèl·lules, després en quatre, en vuit, en setze, etc. Aquestes cèl·lules resultants de les primeres etapes de la divisió del zigot s’anomenen blastòmers. La segmentació i el seu resultat varien bastant en funció de la quantitat de vitel (reserva alimentària) de què disposa la cèl·lula ou. El ventall de variacions possibles queda representat en l’ou de l’eriçó de mar, amb poc vitel però ben repartit; el de la granota, amb abundant vitel però concentrat en un pol de l’ou, i el de la gallina, amb gran quantitat de matèria nutritiva (que permet un llarg desenvolupament de l’embrió abans de l’eclosió de l’ou).
En el desenvolupament de l’ou de l’eriçó de mar, la segmentació és «igual», és a dir, origina blastòmers, de grandària sensiblement igual, que formen una petita massa de cèl·lules, la mòrula (dita així perquè té l’aspecte d’una petita móra). Posteriorment, mitjançant el desplaçament de les cèl·lules cap a la perifèria, s’origina una pilota, anomenada blàstula, amb una cavitat interior, el blastocel, plena de líquid.
Primera divisió: 2 cèl·lules
Cinquena divisió: 32 cèl·lules
divisió: 4 cèl·lules
Tercera divisió: 8 cèl·lules
En aquest tipus de segmentació, pràcticament no hi ha augment de grandària (els blastòmers són cada vegada més petits), de manera que durant un temps hi ha desenvolupament sense creixement. En el zigot de la granota, en canvi, es diferencien dos pols, l’un més proper a la zona per on ha penetrat l’espermatozoide, el pol animal, i l’altre oposat, el pol vegetatiu. Per segmentació desigual, es formen unes cèl·lules més petites al pol animal, a partir de les quals s’originarà la major part de l’embrió, mentre que al pol vegetatiu s’originaran cèl·lules més grans amb molt més vitel.
En la cèl·lula ou de la gallina, la segmentació té lloc exclusivament en un petit disc de cèl·lules procedents del nucli fecundat, situades entre el rovell i la clara de l’ou. Les divisions cel·lulars són incompletes i, si bé al principi totes les cèl·lules tenen accés al vitel, poc temps després algunes cèl·lules comencen a créixer cap a baix i formen dues capes que originen una mòrula aplanada. Posteriorment, es forma una cavitat entre les dues capes i així s’origina la blàstula.
Primeres divisions cel·lulars fins a la formació de la blàstula.
a) Presència i repartició desiguals del vitel en l’ou de l’eriçó de mar, la granota i la gallina.
b) La segmentació en l’eriçó de mar i la gallina.
Del desenvolupament del zigot de l’eriçó de mar s’origina una larva ciliada. Però si en la fase de 8 cèl·lules partim l’embrió per la meitat poden passar dues coses. Si la divisió es fa en el pla longitudinal (vertical), tant les 4 cèl·lules de la meitat dreta com les 4 de l’esquerra originaran una larva normal. Però si la divisió es fa amb un tall transversal (horitzontal), cap de les dues meitats prospera bé. La part superior desenvolupa cilis però poca cosa més. La part inferior, en canvi, resulta mancada de boca i de cilis. Això passa perquè en aquella fase inicial en què s’ha produït el tall ja hi ha una diferenciació entre un pol animal (superior) i un pol vegetatiu (inferior) determinada pel gradient de distribució de factors químics o determinants citoplasmàtics (molècules d’ARNm o de proteïnes) entre els dos pols embrionaris.
6.2.
L’etapa següent del desenvolupament és la gastrulació, fase que determina la fesomia bàsica de l’organisme adult. Efectivament, alhora que hi ha un augment real de la grandària, els moviments o desplaçaments cel·lulars (morfogènesi) determinen que les cèl·lules del pol vegetatiu s’enfonsin, s’invaginin, com una pilota desinflada, cap al blastocel. Es forma així una estructura en dues capes cel·lulars, amb una cavitat nova, l’arquènteron, o intestí primitiu, que s’obre a l’exterior pel blastòpor, que es convertirà en anus. En fases posteriors, les cèl·lules de l’extrem replegat tocaran les cèl·lules de la paret oposada i s’hi obrirà un nou forat, que esdevindrà la boca, alhora que l’embrió quedarà convertit en un tub obert pels dos extrems.
La capa cel·lular externa és l’ectoderma i la capa interna, l’endoderma. Algunes cèl·lules properes al blastòpor, i també d’altres de la zona oposada, es desprenen, se situen entre l’ectoderma i l’endoderma i originen un mesènquima primitiu que esdevé la tercera capa de cèl·lules, el mesoderma. En aquest moment, l’embrió rep el nom de gàstrula, mentre que el terme gastrulació representa tot el procés de formació embrionari.
Aquestes tres capes germinatives primàries constitueixen les primeres àrees diferenciables en l’embrió animal i originaran els òrgans i teixits concrets de l’organisme adult.
En l’embrió de granota i de pollastre, la gastrulació transcorre més lentament i segueix unes etapes d’aspecte força diferent. Reprenent el símil de la pilota desinflada, és fàcil d’entendre-ho. L’embrió de granota pot comparar-se amb una pilota mig plena de sorra, i el de pollastre, amb una pilota gairebé plena del tot. En aquestes condicions, la invaginació de la zona que originarà l’endoderma es pot produir només parcialment en la granota i molt poc en l’embrió de pollastre. No obstant això, en ambdós casos el resultat és el mateix: un embrió amb tres capes germinatives primàries, a partir de les quals s’originaran tots els teixits i òrgans.
Blastòpor Ectoderma
Endoderma
Mesoderma Blastocel
Arquènteron
Començament de la formació del mesoderma.
Ectoderma Mesoderma Endoderma
Epidermis, pèls i ungles.
Glàndules sudorípares.
Sistema nerviós.
Mucoses de revestiment del nas, de la boca i de l’anus.
Esmalt dentari.
Dermis.
Teixits connectiu, cartilaginós i ossi, musculatura, mesenteri. Dentina de les dents. Sang i vasos sanguinis. Ronyons i gònades.
Mucoses del tub digestiu, de la tràquea, dels bronquis, dels pulmons, de la uretra i de la bufeta urinària.
Fetge i pàncrees.
Tim, tiroide i paratiroide.
Segons la presència de dues o tres capes cel·lulars embrionàries, els diferents fílums animals es poden dividir en els tipus següents:
• Diploblàstics. Inclouen els animals amb ectoderma i endoderma, com ara els porífers (esponges), els animals pluricel·lulars més simples i els celenterats o cnidaris (meduses i coralls). En aquests animals, entre les dues capes cel·lulars hi ha una capa de cèl·lules indiferenciades: la mesoglea.
• Triploblàstics. Amb tres capes de cèl·lules ben formades. Inclouen els altres fílums d’animals pluricel·lulars.
– Protostomats. Inclouen els grups d’animals en els quals la boca es forma a partir de l’àrea del blastòpor, tal com succeeix en els anèl·lids, mol·luscos i artròpodes, entre d’altres.
– Deuterostomats. Inclouen els grups d’animals en els quals l’anus procedeix de l’àrea del blastòpor i la boca és de neoformació. Inclouen animals com ara els equinoderms i els cordats (inclosos els vertebrats).
– Celomats. Animals que tenen una cavitat secundària del cos, d’origen mesodèrmic. Són celomats la major part dels fílums dels pluricel·lulars triploblàstics. Són acelomats, entre d’altres, els platihelmints.
Els vegetals i els animals presenten importants diferències pel que fa al desenvolupament. El fet que les cèl·lules vegetals tinguin una paret vegetal gruixuda fa que les migracions i els moviments propis de les cèl·lules embrionàries animals siguin, en les plantes, molt més limitats. Per altra banda, cal tenir en compte que l’estructura de les plantes és, en termes comparatius, més senzilla, amb un
màxim de quinze o vint tipus cel·lulars diferents, i que el seu creixement no és limitat com el dels animals, sinó continuat, a base de mòduls o unitats que es van repetint per ramificació. Això és possible perquè, a diferència dels animals, les plantes conserven en la vida adulta zones específiques de creixement: els meristemes.
La conseqüència d’aquest fet és que mentre el creixement dels animals, el qual té lloc en les fases juvenils, és limitat, el de les plantes és continu, per bé que local, i no tan definit. La forma de les plantes també és més indefinida, molt més plàstica, més variable en funció de les condicions en què viu cada individu.
Per a l’estudi de les etapes del desenvolupament orgànic és convenient emprar organismes de biologia ben coneguda. Entre els animals són especialment indicats, per exemple, els amfibis del gènere Xenopus i, pel que fa als vegetals, l’Arabidopsis, una petita planta de la família de la col, de desenvolupament ràpid.
6.3. El control de la diferenciació i de l’organogènesi
La diferenciació de les cèl·lules de les capes germinatives per formar òrgans i teixits específics té lloc, bàsicament, mitjançant un procés denominat d’inducció embrionària. La formació del sistema nerviós n’és un bon exemple. El procés és el següent: les cèl·lules ectodèrmiques del llavi dorsal del blastòpor entren en contacte amb les del mesoderma, contacte que origina l’elongació de les primeres per formar la placa neural. A continuació, les cèl·lules d’aquesta placa comencen a plegar-se i a créixer cap a baix, fins que els dos costats es toquen i es fusionen per formar el tub neural.
La inducció primària que origina tota aquesta seqüència és el contacte entre el sostre de l’arquènteron (quan actua d’inductor) i les cèl·lules de l’ectoderma proper (que són induïdes). Sense contacte, tal com demostren estudis experimentals, no hi ha desenvolupament de la placa neural.
De fet, les cèl·lules del llavi dorsal del blastòpor actuen induint tot el desenvolupament posterior; per aquest motiu, es consideren les organitzadores del desenvolupament embrionari.
Segons el model de la inducció, un grup de cèl·lules induïdes per contacte amb un inductor poden esdevenir al seu torn inductors secundaris de processos posteriors, cada vegada més especialitzats (i a vegades recíprocs). En l’àmbit molecular, les causes de la inducció no són gaire clares, si bé sembla que es tracta d’un procés d’estimulació selectiva dels gens presents en les cèl·lules induïdes (que el procés afecta els gens del teixit induït ho demostra el fet que, experimentalment, és possible la inducció creuada; per exemple, induir l’ectoderma de salamandra a partir del mesoderma de granota, si bé aquest últim respon d’acord amb les potencialitats genètiques de la salamandra, no de la granota).
6.4. El desenvolupament postembrionari
La diferenciació de teixits i d’òrgans encara continua una vegada l’animal neix i comença la seva vida lliure, fins a arribar a la maduresa. Aquest procés rep el nom de desenvolupament postembrionari. Molts animals neixen després d’un llarg període embrionari, en el qual han consumit les nombroses substàncies de reserva emmagatzemades en l’ou, o bé les substàncies procedents de la mare, de manera que el seu desenvolupament ja és notable i tots els òrgans, llevat dels sexuals, tenen un alt grau de maduresa o es troben, com a mínim, ben apuntats. Aquests animals es diu que tenen un desenvolupament directe, i en són exemple els vivípars (entre ells els mamífers), molts ovípars que ponen ous amb una gran quantitat de vitel (entre ells els rèptils i els ocells) i també alguns insectes, com ara els apterigots.
S’anomena organogènesi el procés embrionari que comporta la formació de teixits i òrgans. En aquest procés, hi té una funció clau la denominada inducció embrionària.
Un segon grup d’animals tenen, en canvi, un desenvolupament indirecte Aquests animals procedeixen d’ous amb poc vitel i neixen en forma de larva, és a dir, en un estat de vida lliure diferent de l’adult. Abans d’arribar a l’estat adult o imago, han de sofrir un seguit de transformacions anatòmiques i fisiològiques que reben el nom de metamorfosi.
Un primer tipus de metamorfosi és la metamorfosisenzilla o hemimetàbola, pròpia d’alguns insectes (xinxes o llagostes), però també d’altres grups d’animals, com ara els amfibis o els equinoderms. Aquest tipus de metamorfosi es caracteritza perquè la larva, que s’assembla força a l’adult, no passa per períodes d’inactivitat i no para d’alimentarse mentre dura el seu desenvolupament. En canvi, en la metamorfosicompleta o holometàbola, la larva (sovint en forma de cuc, com és ara el cas de l’eruga de les papallones) ha de passar per un estat quiescent, la pupa o crisàlide, abans d’arribar a la fase adulta. Durant la fase de la crisàlide, s’interromp tota activitat externa i tenen lloc profundes transformacions de teixits i d’òrgans. Aquest segon tipus de metamorfosi és pròpia dels insectes coleòpters (escarabats), lepidòpters (papallones), himenòpters i dípters (mosques).
a) Metamorfosi senzilla (hemimetàbola) en la llagosta.
b) Metamorfosi completa (holometàbola) en la papallona.
Els teixits animals es classifiquen en cinc tipus principals: epitelial, connectiu, esquelètic, muscular i nerviós.
• Teixit epitelial
Recobreix la superfície corporal externa i entapissa les cavitats internes. Les seves funcions principals són protectora (epiteli de revestiment), secretora (epiteli glandular) i absorbent.
• Teixit connectiu
Dóna suport estructural (forma la bastida o l’embolcall d’altres teixits; la matèria existent entre altres teixits) i funcional (porta els vasos sanguinis i regula els intercanvis de substàncies entre la sang i els teixits). Una tercera funció d’algunes cèl·lules d’aquest teixit és la defensiva (els macròfags són uns veritables escombriaires de diferents teixits del cos).
Les varietats de teixit connectiu són: lax, dens, reticular i mieloide o limfoide.
• Teixit esquelètic
El teixit ossi forma els ossos, i el teixit cartilaginós, els cartílags. Els ossos estan formats pels osteòcits, unes cèl·lules molt transformades, i per matèria intracel·lular orgànica i inorgànica (principalment fosfat de calci). Fan de suport a molts òrgans, els protegeixen, permeten la inserció de la musculatura i són una important reserva de calci. Els cartílags estan formats per una matèria semirígida que envolta els extrems dels ossos llargs i que constitueix els discos intervertebrals, la tràquea, l’arbre bronquial, les orelles i el nas. Les seves cèl·lules són els condròcits.
• Teixit muscular
Està format per unes cèl·lules molt especialitzades, les fibres musculars, que tenen la capacitat de contreure’s. Els músculs són paquets de fibres musculars, agents de la locomoció i del moviment. Hi ha tres tipus de teixit muscular: esquelètic o estriat (de contracció potent, ràpida i voluntària), visceral o llis (de contracció no gaire enèrgica, continuada i involuntària) i cardíac (de contracció potent, continuada, rítmica i autònoma).
• Teixit nerviós
Està format, principalment, per les neurones, que posseeixen la capacitat d’excitabilitat, és a dir, la possibilitat de transmetre impulsos elèctrics com a conseqüència d’un estímul rebut. Forma l’encèfal, la medul·la espinal, els nervis i els ganglis nerviosos. Les neurones es comuniquen per mitjà de les sinapsis. El teixit nerviós inclou un segon tipus de cèl·lules, les cèl·lules glials, de funcions auxiliars.
Secció de glàndula salival tenyida, vista a través del microscopi òptic.
Osteòcit de fèmur (en fals color) vist a través del microscopi electrònic (4000x).
Neurones cerebrals (en fals
vistes a través del microscopi electrònic (100x).
Llavor de dicotiledònia
Amb endosperma
Tegument o testa
Cotilèdons Plúmula
Embrió
Radícula
Sense endosperma
Tegument o testa
Cotilèdons Plúmula
Els vegetals presenten, respecte als animals, algunes diferències notables en el seu desenvolupament, les quals estan determinades pel fet que les plantes són sistemes oberts, en els quals perduren grups de cèl·lules embrionàries, els meristemes, que retenen les potencialitats de les cèl·lules indiferenciades. El creixement de les plantes no és definit ni té un límit temporal estricte. Els vegetals funcionen com a organismes en desenvolupament permanent però estacionari. D’altra banda, la forma dels vegetals no és limitada, com en el cas dels animals, sinó que presenta una plasticitat notable en funció d’estímuls o de factors tant interns com externs. Cal esmentar, per exemple, les diverses formes que es poden donar a les capçades dels arbres mitjançant una adequada esporgada, la gran quantitat de metres que poden arribar a mesurar algunes lianes, entre aquestes les cultivades, com ara les heures, o, en el cas oposat, el cultiu dels bonsais.
A partir de la fecundació, les parets de l’ovari creixen i es transformen i, per regla general, les altres parts de la flor es marceixen. L’ovari i els òvuls fecundats es transformen, respectivament, en el fruit i les llavors.
Embrió
Radícula
Llavor de monocotiledònia
Embrió
Tegument o testa
El procés de formació del fruit comporta un augment considerable de volum i de massa, el qual, en última instància, és degut a un augment del volum cel·lular, perquè s’acumula una gran quantitat de substàncies.
Les llavors es formen a partir dels òvuls fecundats. En una llavor, podem distingir l’embrió, el teixit nutrici o endosperma i la coberta, testa o episperma.
L’embrió, tot i tenir un aspecte i una mida molt variables en funció de la llavor, sempre presenta les parts següents: plúmula, o tija rudimentària; radícula, arrel rudimentària que originarà l’arrel primària de la planta, i fulles seminals, embrionàries o cotilèdons, en nombre variable (una en les angiospermes monocotiledònies, dues en les angiospermes dicotiledònies i generalment més de dues en les gimnospermes).
Radícula
Teixit nutritiu de la llavor o endosperma
Cotilèdon únic
Peduncle
Estructura de la llavor.
L’endosperma és el teixit nutrici, ple de substàncies de reserva, que s’origina a partir d’una segona fecundació, paral·lela a la de l’òvul. Pot ser molt reduït i fins i tot pot faltar del tot en aquelles plantes en les quals els cotilèdons actuen com a dipòsit de substàncies de reserva. El desenvolupament de l’embrió de la llavor pot quedar retingut durant un període de temps més o menys llarg, anomenat de dor-
mició o latència. En les llavors closes a l’interior d’un pinyol dur és necessària la degradació prèvia de la coberta, que fins i tot es pot produir per l’acció dels enzims del tub digestiu d’un animal. La germinació és el pas de la llavor de la vida latent a la vida activa mitjançant la utilització de les reserves nutritives que conté. Les diverses parts de l’embrió es transformen en les parts típiques de la nova planta.
La capacitat de germinació de les llavors té una durada limitada, i mentre en els salzes i els oms és de pocs mesos, en la major part dels cereals se situa entre els 3 i els 15 anys. El cas més notable que es recorda és el d’una planta, el lotus de l’Índia de Manxúria, les llavors de la qual conserven la seva viabilitat al cap de 250 i, fins i tot, 400anys.
Entre els factors externs que condicionen la germinació, és prou coneguda la necessitat d’aigua i d’una certa temperatura, però en altres casos és necessari un període previ sec, o de fred. També hi influeix el fotoperíode.
Després d’haver absorbit l’aigua necessària, la germinació de la llavor comença amb l’esquinçament de la testa i la sortida, en primer lloc, de la radícula, que una vegada fora s’endinsa en el sòl, emet pèls absorbents i comença a ramificar-se i a absorbir les substàncies nutritives. Al mateix temps, emergeix la tigeta i, en arribar a la superfície del sòl, continua el seu creixement ascendent. Els cotilèdons poden acompanyar la tigeta en aquesta ascensió i emergir (germinació epigea), com és ara el cas de les llavors de ceba o de mongeta, o poden restar a l’interior de la llavor (germinació hipogea), tal com succeeix amb les llavors de les faves i dels pèsols.
Llavor de mongeta
Micròpil
Hílum
Tegument o testa
Llavor sense tegument
Radícula
Llavor amb plàntula
Tija rudimentària
Radícula
Les diferents parts de la llavor de la mongeta i el començament de la germinació.
Germinació epigea de la mongetera.
Meristema apical d’arrel de ceba vist a través del microscopi òptic.
Epidermis de fulla de lliri vista a través del microscopi òptic.
Teixits vegetals
• Teixits embrionaris o de creixement (meristemes)
Creixement i formació de nous òrgans. Estan formats per cèl·lules embrionàries que es divideixen de manera contínua i tenen la paret cel·lular molt prima. Es troben a la punta (meristemes apicals) i a l’interior (meristemes romanents) de tiges i arrels. El càmbium és el teixit del meristema romanent responsable del creixement en gruix de les tiges i les arrels dels vegetals que en tenen.
• Teixits adults
– Parènquima o teixit fonamental
Constitueix la massa principal de moltes plantes (especialment les herbàcies) i està format per cèl·lules grans, vives, poc diferenciades i amb grans vacúols. El parènquima assimilador conté cloroplastos; es troba a les fulles i a les tiges verdes, i en les seves cèl·lules té lloc la fotosíntesi. El parènquima de reserva abunda en els òrgans especials de reserva, com ara arrels napiformes, tubercles, etc.
– Teixits aïlladors
Fan la funció d’aïllar els òrgans aeris. Impermeabilitzen i actuen com a cicatritzants de ferides. N’hi ha de quatre tipus: l’epidermis (es troba a la superfície dels òrgans aeris tendres), l’endoderma, l’exoderma i el súber o suro. El rizoderma (epidermis de l’arrel) absorbeix l’aigua i els nutrients del sòl.
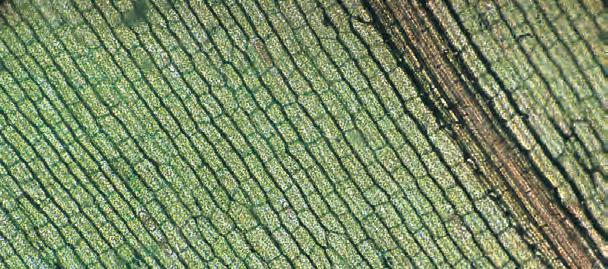
– Teixits conductors
Tall transversal d’una tija de til·ler de quatre anys, tenyit i vist a través del microscopi òptic.
– Teixits mecànics o de sosteniment
Donen consistència als òrgans aeris de les plantes. El col·lènquima està format per cèl·lules vives, allargades, poc diferenciades, amb plastidis i amb la paret cel·lular gruixuda. Reforça els òrgans aeris tendres (en creixement). L’esclerènquima està format per cèl·lules mortes amb la paret molt lignificada; dóna consistència als òrgans vells.
S’encarreguen de transportar l’aigua, les sals minerals i els productes de la fotosíntesi a les diferents parts de la planta. El xilema (lleny), format per cèl·lules mortes (les tràquees), condueix la saba bruta i fa de sosteniment a les tiges velles. El floema (líber), format per cèl·lules vives, allargades (els vasos liberians), condueix la saba elaborada per tota la planta.
– Teixits de secreció i d’excreció
Produeixen i acumulen substàncies del metabolisme secundari. Es troben per tota la planta, i els productes que originen són alliberats a l’exterior o bé guardats al citoplasma de les cèl·lules. En són exemples els pèls secretors, els conductes lactífers (produeixen un suc blanc o làtex) i resinífers, les bosses d’essències, etc.
Les activitats reproductores de la major part dels organismes són cícliques. Els cicles reproductors són estacionals i estan coordinats de tal manera que les cries neixen en l’època de l’any més favorable per sobreviure.
Aconseguir la sincronització reproductiva és vital per a la conservació de les espècies, ja que en molts casos els individus únicament són fèrtils durant una determinada època (període de zel). És necessari que els animals en període reproductiu es trobin per possibilitar la fecundació dels gàmetes.
Tenen aquesta finalitat les migracions de moltes espècies d’ocells i de peixos, les reunions en determinats territoris d’animals que normalment viuen aïllats, l’apropament dels sementals a ramats formats per femelles, cries i mascles vells, etc.
Per afavorir la reproducció, els animals han desenvolupat diversos sistemes de comunicació, que sovint són comuns a tasques defensives, de marcatge del territori, etc.
L’etologia
L’etologia és la branca de la biologia que estudia científicament el comportament animal, una part bàsica del qual és el comportament reproductor. Cal considerar el comportament com un procés biològic, com ara la respiració o l’excreció, amb una base genètica i, per tant, susceptible d’evolucionar.
D’altra banda, el comportament pot estar influït en un grau variable per l’experiència, de manera que l’aprenentatge es pot definir com la modificació del comportament com a conseqüència d’experiències específiques.
La conducta animal és, en bona part, instintiva, és a dir, innata, hereditària i no apresa.
L’any 1973 es va atorgar el premi Nobel de fisiologia i medicina als dos zoòlegs austríacs Karl von Frisch i Konrad Lorenz i al zoòleg holandès Nikolaas Tinbergen, que són considerats els fundadors de l’etologia moderna.
La sociobiologia és aquella branca de l’etologia que estudia els fonaments biològics del comportament social d’alguns animals.
L’etòleg Konrad Lorenz va demostrar que algunes aus, com ara l’ànec, en néixer, identifiquen l’objecte mòbil i cridaner més proper amb la mare i el segueixen a tot arreu. Ara bé, si en el moment de l’eclosió de l’ou se substitueix la mare per un altre ànec, una persona o un objecte inanimat però dotat de moviment i cridaner, els pollets el segueixen perquè l’identifiquen amb la mare. En aquest cas, la identificació sobtada i el seguiment formen part del comportament innat de l’au, però el reconeixement de la mare és adquirit. Aquesta pauta de conducta, resultat de la interacció del programa genètic de l’animal amb l’exterior, conté elements innats i adquirits i s’anomena impregnació.
Les antenes són òrgans sensitius que tenen fossetes olfactives entre els artells. Gràcies a aquestes fossetes olfactives els mascles de papallona nocturna, com ara el d’aquesta fotografia, poden captar les feromones emeses per les femelles.
Els senyals per comunicar-se
Els animals han desenvolupat un complex sistema de senyals per comunicar-se entre els individus de la mateixa espècie. Una part important d’aquesta comunicació té finalitats reproductives.
Els senyals auditius
Són útils per localitzar la presència del mascle o de la femella, per donar crits d’alarma, de desemparança o d’intimidació, i per al marcatge del territori. Els utilitzen sobretot els animals que es desplacen per medis boscosos.
Entre els avantatges, cal destacar que es transmeten gairebé instantàniament, que poden arribar molt lluny i que es reben amb facilitat, fins i tot durant la nit.
Com a desavantatges, cal destacar que els depredadors els poden sentir, que cal repetir-los amb freqüència i que són poc efectius sota l’aigua (excepte per als cetacis).
Els senyals visuals
Són útils en les parades nupcials, en els contactes socials, en el marcatge del territori i en algun altre cas.
Entre els avantatges, cal destacar-ne la gran varietat: mímica, actituds, danses, excrecències diverses, colors, emmascaraments temporals, etc. Poden persistir indefinidament i, en general, tenen més eficàcia que els senyals sonors.
Com a desavantatges, cal destacar que únicament funcionen de dia (excepte per a les cuques de llum), al descobert i a una distància curta. A més, els colors els fan particularment vulnerables davant dels depredadors.
Els senyals químics (olors i feromones)
Es fan servir en el marcatge del territori, en la crida sexual a distància, en les parades nupcials, en el reconeixement social dels individus del mateix clan, en les situacions d’alarma… Són el tipus de senyal que més freqüentment utilitzen els invertebrats.
Entre els avantatges dels senyals químics, cal esmentar que persisteixen durant hores o, fins i tot, dies, que la seva localització per part dels depredadors és més difícil respecte als altres tipus de senyals, que funcionen en absència de l’emissor i que la seva emissió i la seva recepció no requereixen òrgans gaire perfeccionats.
Les feromones són substàncies químiques que, emeses en un medi (aire o aigua) per un animal, són captades per altres animals de la mateixa espècie. Les feromones desencadenen, en els animals que les capten, uns comportaments determinats. Les feromones sexuals provoquen l’atracció entre individus de sexe contrari per facilitar la reproducció.
Algunes feromones són molt volàtils i requereixen òrgans olfactius per ser rebudes, mentre que d’altres han de ser ingerides i necessiten una percepció gustativa.
La comunicació mitjançant feromones és la més simple i la primera que va aparèixer en el curs de l’evolució. És molt important produir poca substància, perquè així és més fàcil de transportar. Alguns protoctistos (amebes i paramecis), les planàries (cucs plans), etc., utilitzen les feromones com a únic sistema de comunicació.
En algunes espècies de peixos, com ara l’arengada, els òvuls dipositats a l’aigua per les femelles atreuen els espermatozoides mitjançant feromones.
En certs animals (molts insectes, alguns ratolins, etc.), els mascles emeten feromones que indueixen la maduresa sexual de les femelles.
El galanteig és el conjunt de comportaments que tenen per finalitat la formació de parelles, que és la fase prèvia a l’acoblament. En les parades nupcials, predominen els senyals visuals, com ara colors brillants, estufament de les plomes, pèls i excrecències de la pell (per exemple les crestes dels galls), moviments del cap, de les articulacions i del cos, cops rituals, danses diverses, etc. Sovint, les parades nupcials van acompanyades de senyals sonors i olorosos. A més de tractar d’aconseguir el reconeixement i l’acceptació de la femella, les parades nupcials també serveixen per transmetre una amenaça als possibles rivals. En moltes parades nupcials, els mascles es fan tan vistosos, grans i sorollosos com poden. També és clar que en les parades nupcials s’intenta evitar que les femelles es confonguin i s’aparellin amb mascles d’espècies semblants.
La cua del paó és una exhibició visual que el mascle desplega en el transcurs de la parada nupcial.
8.3. La protecció i l’aprenentatge de les cries
Al llarg de l’evolució, els animals han desenvolupat sistemes cada vegada més evolucionats per tenir cura dels embrions i assegurar el naixement de les cries.
En els insectes socials (abelles, formigues, etc.), la cura dels ous i l’alimentació de les cries és un aspecte essencial en les complexes societats que originen.
En els vertebrats, la cura dels embrions i de les cries ha experimentat una progressiva complexitat des dels peixos fins als mamífers. La major part dels peixos i amfibis no proporcionen proteccions prou segures als ous ni a les cries. Han de pondre una gran quantitat d’ous per assegurar la descendència.
Els rèptils van desenvolupar un nou tipus d’ou, anomenat amniota, amb proteccions i abundant matèria nutritiva per facilitar el seu desenvolupament. Els ous d’alguns grups de rèptils, com ara els dels cocodrils, proporcionen una veritable protecció a les cries.
La major part dels ocells incuben els seus ous durant llargs períodes de temps, fins a la seva eclosió. No obstant això, la major part de les cries neixen cegues i sense plomes, i necessiten l’alimentació i la protecció dels pares per sobreviure.
Les femelles de gairebé tots els mamífers retenen els embrions en el seu interior i els alimenten mitjançant la placenta. L’alimentació, la protecció i l’aprenentatge duren llargs períodes de temps.
En els animals que tenen cura de les seves cries, el comportament maternal es desencadena de manera automàtica, sense tenir cap experiència prèvia, però únicament si la infància de la mare s’ha desenvolupat amb normalitat. S’ha comprovat que una mare criada sense contacte amb altres individus de la seva espècie manifesta molt poc interès per la seva descendència. L’afecte manifestat envers una femella jove determina el seu comportament maternal, com si reproduís les conductes que va rebre de la seva mare.
El contacte dels animals joves amb la seva mare o amb els congèneres de l’espècie és molt important, ja que, de manera involuntària, emmagatzemen informacions sobre la seva espècie. Si reben informacions diferents, el seu comportament d’adult es veurà modificat. Per exemple, s’ha comprovat que uns cadells de gos criats per gats aprenen la gesticulació d’aquests, és a dir, es renten la cara amb les potes, esperen els ratolins a la sortida de les rateres, etc. De la mateixa manera, un gall criat per una ànega no dubtarà, en l’edat adulta, a banyarse amb els ànecs i tractarà d’aparellar-se amb ànegues.
5.33. Indica si són certes o falses les frases següents:
a)La gàstrula està formada per dues capes de cèl·lules ben diferenciades.
b)Els meristemes són teixits vegetals indiferenciats que poden créixer.
c)En els animals deuterostomats, la boca deriva del blastòpor.
d)Els vegetals, a diferència dels animals, no tenen un límit clar en el seu creixement.
e)El desenvolupament embrionari directe es produeix per metamorfosi.
f)En la blàstula, el blastòpor és l’orifici que comunica amb l’exterior.
g) Un blastòmer és una cèl·lula indiferenciada d’un meristema.
h) Metamorfosi senzilla és sinònim d’hemimetàbola.
i) Els porífers o esponges són animals triploblàstics.
j) La pupa o crisàlide és la fase quiescent de la metamorfosi completa dels insectes.
Treure els polls als congèneres és una pràctica habitual entre els primats. Aquesta pràctica contribueix, juntament amb altres conductes que impliquen contacte físic, a la cohesió del grup i a l’aprenentatge de la conducta.
La conducta sexual és més elaborada en els vertebrats superiors. Entre els mamífers i els ocells aquesta conducta continua després de la reproducció, durant el període de temps dedicat a tenir cura de la prole o, en el cas dels animals socials, a afavorir l’aprenentatge i la cohesió del grup.
5.34. Copia aquest text i completa’n els espais buits amb les paraules següents: arquènteron, zigot, funció, blastòpor, capes, diferenciació, gàstrula, blastocel, mitosis, blàstula, blastòmers i mòrula.
En el desenvolupament del …, les successives … donen lloc a una agrupació de cèl·lules, anomenades …, que rep el nom de … . La … cel·lular consisteix en una modificació de l’estructura i de la … de la cèl·lula, amb formació de cèl·lules especialitzades. La … és una mena de pilota de cèl·lules que delimiten una cavitat interna, el … .
L’etapa següent en el desenvolupament és la …, que es produeix per invaginació de les cèl·lules de la blàstula i la formació de dues … de cèl·lules, i una cavitat , l’…, que s’obre a l’exterior pel … .
5.35. Indica en quin ordre es produeixen els següents processos en el desenvolupament embrionari d’un insecte amb metamorfosi completa: formació de la gàstrula, fase de quatre blastòmers, pupa, formació del celoma, segmentació, formació del blastòpor, formació de l’imago, formació del mesoderma.
5.36. Indica quatre teixits dels mamífers que provinguin de cadascuna de les tres capes germinatives següents: ectoderma, mesoderma i endoderma.
5.37. Explica les principals diferències entre la metamorfosi senzilla i la complexa. Fes un esquema del cicle d’un insecte del primer grup id’un del segon grup.
5.38. Explica el significat de la frase: «Durant el desenvolupament embrionari, els caràcters generals apareixen abans que els propis de l’espècie.» A quina llei biològica fa referència? Fins a quin punt es pot considerar correcta aquesta frase?
5.39. Defineix el concepte de metamorfosi hemimetàbola, indica algun sinònim d’aquest terme i posa’n algun exemple. Indica el nom d’algun producte de consum i alguna plaga relacionada amb les erugues de determinades papallones.
5.40. Enumera tres tipus de senyals visuals i tres d’auditius que sovint fan servir els animals per comunicar-se entre ells i explica’ls. Explica també en quins ambients o medis naturals poden resultar més eficaços.
5.41. Defineix el terme comportament aplicat a la biologia. Explica les diferències entre el comportament instintiu i l’aprenentatge.
5.42. Copia i relaciona cada paraula o sintagma del primer grup amb el corresponent del segon grup.
Primer grup: blastocel, gàstrula, imago, hemimetàbola, pupa, teixit vegetal embrionari, material nutritiu de l’ou, larva, pèls, deriva de l’endoderm.
Segon grup: metamorfosi senzilla, fetge, meristema, vitel, desenvolupament postembrionari, deriva de l’ectoderma, insecte adult, blàstula, crisàlide, blastòpor.
5.43. Explica les diferències entre la fecundació interna i l’externa. Exemplifica.
5.44. Indica en quin moment l’embrió animal rep el nom de blàstula i en quin moment, el de gàstrula.
5.45. Quina és la principal característica de l’embrió i dels adults dels animals diploblàstics? Posa un exemple d’aquest tipus d’animals.
5.46. Explica les diferències entre els animals deuterostomats i els protostomats.
5.47. Alllargdeldesenvolupament, els embrions dels animals desenvolupen diferents tipus de cavitats internes. Defineix els termes blastocel, arquènteron i celoma.
5.48. Defineix què és una parada nupcial i explica’n algun exemple que coneguis.
5.49. Consulta una enciclopèdia i escriu una breu biografia de Konrad Lorenz, considerat un dels fundadors de l’etologia moderna.
Explica el concepte d’empremta, una de les principals aplicacions de Konrad Lorenz al camp de l’etologia.
5.50. Com es diuen els tipus de senyals olorosos més freqüents en la comunicació entre els animals? Explica les seves característiques.
5.51. Fes un breu resum de com es va perfeccionant la seguretat dels embrions i de les cries en els vertebrats, des dels peixos fins als mamífers.
5.52. Explica quins són els principals senyals visuals i auditius que els animals fan servir per comunicar-se. Fes una llista amb els avantatges i els desavantatges que té cada un d’aquests senyals.
5.53. Defineix els termes llavor i germinació i indica quines condicions afavoreixen, en general, la germinació. Explica també les diferències entre la germinació hipogea i l’epigea.
5.54. Les llavors tenen una gran importància tant en l’agricultura com en l’alimentació humana. Fes un petit treball en relació amb aquesta importància en el cas concret de l’agricultura i l’alimentació mediterrànies.
1. El gràfic de peu de pàgina mostra el nivell d’ADN cel·lular en el transcurs del cicle cel·lular, mentre que la taula d’aquesta columna permet relacionar la quantitat d’ADN amb el nombre de cromosomes. A partir de la informació que contenen la taula i el gràfic, contesta a les preguntes següents:
a)Quina fase del cicle cel·lular representen els segments 1, 2 i 3?
b)A què corresponen les lletres A i B?
c)Per què augmenta la quantitat d’ADN durant la fase 3?
d)Per què baixa, i de manera tan sobtada, el nivell d’ADN durant A i B?
2. Copia aquest text i completa’l amb les paraules següents: parades, social, territori, fèrtils, comunicació, aparellament, naixements, supervivència, cícliques, galanteig, amenaces, fecundació, defensives, reconeixement, sociobiologia i comportament.
Les activitats reproductives de la major part dels animals són … i cal coordinar-les perquè els … es produeixin en les estacions més favorables per a la … . La major part dels animals són … en èpoques molt concretes i cal afavorir l’… durant aquestes èpoques per possibilitar la… .
Per assegurar la reproducció, els animals han desenvolupat sistemes complexos de …, que sovint són comuns a tasques …, de marcatge del …, etc.
L’etologia és l’estudi científic del … animal, mentre que la … estudia els fonaments biològics del comportament … d’alguns animals.
Les … nupcials, o …, tracten d’aconseguir el … i l’acceptació dels mascles per les femelles, però també serveixen per transmetre … als possibles rivals.
3. En la il·lustració a) de la columna del costat, es representen les fases de la metamorfosi de la granota. Respon a les preguntes següents:
a)A quina classe de vertebrats i a quin ordre pertany la granota?
b)Es diu que l’ou de la granota és de tipus anamniota. Explica, fent les consultes oportunes, el significat d’aquest terme.
c)Explica on viu, com es mou i com respira la larva de la granota.
d)Fes un breu resum de les característiques reproductores dels amfibis.
4. En la il·lustració b) de la columna del costat, es representen les fases de la metamorfosi de la papallona de la col. Escriu el nom de cada una de les fases il·lustrades i explica com s’alimenta i quines transformacions experimenta.
5. La investigació sobre les cèl·lules mare ha generat una considerable polèmica de caire sobretot ètic. Busca informació i enumera els arguments mèdics dels que consideren oportuna aquesta investigació i els arguments dels que no l’aproven.
6. Copia la taula de peu de pàgina, referent als diferents tipus de gèrmens, i completa-la.
Espermatozoide
Ovocèl·lula
Propàgul
Anterozoide
Òvul
Objectiu
a) Observació de gèrmens o gònades de diferents organismes.
b) Observació del desenvolupament embrionari de diferents organismes.
Material
– Cucs de farina.
– Llavors de la favera (o d’alguna lleguminosa semblant).
– Flors masculines i femenines i pol·len de pi blanc.
– Flors diverses: ginesta, margaridoia i fenàs.
– Eriçons de mar.
– Lupa binocular i microscopi.
– Portaobjectes i cobreobjectes.
– Cristal·litzadors.
– Material de dissecció: agulles emmanegades, pinces de punta fina, estisores i bisturí.
Al final de l’hivern o al començament de la primavera, el pi floreix i forma dos tipus de flors: les flors masculines i les flors femenines (vegeu les il·lustracions de la pàgina 141).
Observa les flors masculines amb la lupa binocular i descriu-les. Amb un bisturí, talla longitudinalment una d’aquestes flors i observa’n l’eix central i les làmines groguenques. Cada una d’aquestes làmines és un estam amb dues bosses (els sacs pol·línics), en les quals es forma el pol·len. Ara observa una pinya violàcia (inflorescència femenina) formada per nombroses esquames imbricades, les quals, en realitat, són flors femenines molt simples. Arrenca’n una amb cura i observa’n les dues petites cavitats. Hi ha un petit pinyó (llavor), envoltat d’una membrana transparent, en cada una de les dues cavitats.
b)Observació dels gàmetes i de la fecundació en l’eriçó de mar
A la primavera, els eriçons de mar arriben a la maduresa sexual i les seves gònades formen gàmetes. Si es tallen els eriçons per un pla equatorial (com es pot veure en la il·lustració d’aquesta pàgina), s’observen les gònades en forma de cinc masses acolorides. En les femelles, els ovaris són ataronjats, mentre que en els mascles els testicles són més blanquinosos o groguencs.
Omple dos cristal·litzadors d’aigua de mar. En un esbocina-hi un trosset de testicle, per tal d’alliberar els espermatozoides, i en l’altre fes el mateix amb un tros d’ovari.
Agafa aigua de cadascun dels dos cristal·litzadors amb dues pipetes i posa’n una gota en un portaobjectes. Després col·loca-hi al damunt el cobreobjectes.
Observa les dues preparacions al microscopi i descriu els gàmetes (forma, mida, mobilitat, etc.).
Per intentar observar la fecundació, posa en un portaobjectes una gota de suspensió d’òvuls i una d’espermatozoides. Descriu el que succeeix si es produeix alguna fecundació.
Finalment, mescla en un mateix recipient les dues suspensions per tal que, si les condicions són adequades, s’hi produeixin moltes fecundacions. Si poses una gota d’aquesta suspensió en un portaobjectes i l’observes a intervals regulars (15’, 30’, 45’, 1 hora, etc.), podràs veure-hi les primeres fases de la fecundació del zigot.
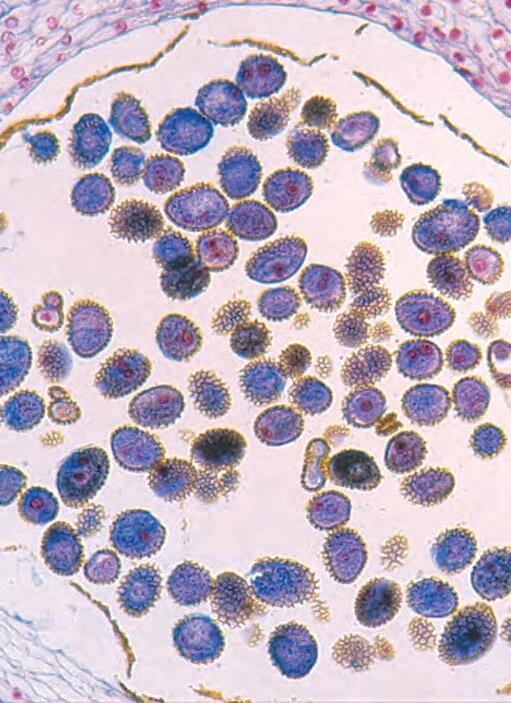
c)Observació de la germinació dels grans de pol·len
Es necessiten flors madures amb pol·len i una solució nutritiva que es prepara al bany maria amb 100 ml d’aigua calenta, 10 g de sacarosa i 3 g de gelatina fosa glicerinada. Si no es disposa d’aquests productes, es pot intentar amb aigua ensucrada, encara que el resultat potser se’n ressentirà.
Per observar els grans de pol·len, posa en un portaobjectes una gota de gelatina fosa i estén-la bé. Damunt la gelatina fosa, sacsejahi una antera madura d’alguna de les flors emprades, o bé tira directament grans de pol·len que hagis recollit prèviament (en primavera és fàcil recollir-ne a les pinedes). Observa la preparació al microscopi i descriu la forma i l’ornamentació dels grans de pol·len. Fes-ne també un dibuix, encara que potser no en sabràs retratar els detalls amb exactitud.
Per observar la germinació del gra de pol·len, amb la formació del tub pol·línic, cal posar unes gotes de la solució nutritiva en un vidre de rellotge ben net. Al mig del líquid es posa un estigma de la flor utilitzada i s’escampen grans de pol·len al seu voltant, fent servir anteres ben madures.
Es posa el vidre de rellotge dins una estufa de cultiu a uns 28 °C durant dues hores i mitja. Si s’observa al microscopi amb un augment mitjà, es poden veure tubs pol·línics clarament orientats cap a l’estigma.
d)Cria i observació del desenvolupament embrionari del cuc de farina
L’anomenat cuc de farina o cuc de rossinyol és la larva d’un escarabat d’un centímetre i mig de longitud aproximadament, de color fosc, generalment negre. El nom de cuc de farina fa referència al fet que es tracta d’un escarabat que es desenvolupa amb gran facilitat en productes alimentaris farinacis, com ara la farina, el pa ratllat, el sègol, etc. El nom de cuc de rossinyol al·ludeix al costum dels ocellaires de donarlos com a aliment als ocells insectívors que es crien en captivitat.
cicle biològic del cuc de farina
La cria d’aquest cuc no pot ser més fàcil. Posa les larves en un recipient amb trossos de pa sec, pa ratllat, farina o sègol. Aquestes larves es poden aconseguir en algunes botigues de fauna i flora, que les venen com a aliment viu per als criadors d’ocells. En condicions normals no necessiten aigua, ja que en tenen prou amb l’aigua que obtenen dels aliments. No calen mesures especials d’il·luminació (més aviat fugen de la llum) ni de temperatura. En tot cas, durant els mesos més freds, cal tapar els recipients de cria amb alguna cosa que en permeti la ventilació.
La durada del cicle biològic complet, en condicions normals, és de 2 o 3 mesos, si bé es pot accelerar augmentant la temperatura ambient.
Les larves tenen forma de cuc i fan uns 3 cm de longitud. Són de color clar, si bé el cap és més fosc, i tenen el cos clarament segmentat. Després de diverses mudes (es poden observar amb facilitat els embolcalls que deixen), es transformen en una pupa, la qual, observada amb una lupa, permet veure alguns òrgans interns. A l’interior d’aquesta pupa es produeixen canvis molt importants en l’anatomia de l’animal, fins a transformar-se en un insecte adult. Aquest, primer és de color clar, i després, al cap de 3 o 4 dies, assoleix el color negre.
Les femelles adultes ponen ous enmig de la farina, que es poden veure amb una lupa senzilla o binocular. Els ous són de forma ovalada, blancs, d’aspecte gelatinós i d’uns 2 o 3 mm de longitud.
Treballs a realitzar amb el cuc de farina
1) Dibuixa un insecte adult i posa el nom a les diferents parts del seu cos. Observa les formes adultes de pocs dies i explica quines diferències hi veus respecte dels adults definitius.
2) Observa (a ull nu i amb la lupa) els diferents estats larvaris en forma de cuc. Després, descriu-los i dibuixa’ls. Observa alguna muda amb la lupa.
3) Observa per transparència els òrgans de la pupa o estat quiescent i descriu-los. Després observa també els ous, descriu-los i dibuixa’ls.
4) Fes un resum de la metamorfosi d’aquest insecte i explica l’exemple d’algun altre tipus d’insecte que es reprodueixi d’aquesta manera (el cuc de seda, la processionària del pi, etc.).
e)Observació i estudi de la llavor i del fruit de la favera
Per fer aquesta activitat, necessites fruits de favera i algunes llavors seques.
El fruit de la favera és un llegum format per una beina d’uns 10 a 20cm de llargària, recta o una mica corbada, de color verd quan és madura, formada per dues valves. Obre una de les beines de favera i observa que la paret interna presenta una pilositat blanquinosa d’aspecte pelfat.
La llavor és de forma el·líptica, d’uns 2 o 3cm de llargada i de color verd. Un petit peduncle uneix la llavor a una de les dues valves del fruit, molt a prop de la sutura de les dues valves.
Observa ara una llavor fresca. Primerament retira els dos teguments, un d’exterior, de color verd i molt fi, i un altre d’interior, blanquinós.
A l’interior, es troben dues masses verdoses, els cotilèdons.
1) Explica a quin grup de plantes pertany la favera.
2) Quines altres plantes de gran consum pertanyen al mateix grup?
f)Observació i dissecció de diferents tipus de flors
Observa amb detall les il·lustracions següents i llegeix el text que les acompanya. Aconsegueix un exemplar de cada una de les flors descrites i, fent servir el material de dissecció, separa’n les diferents parts i enganxa-les a un full de paper.
La flor de la ginesta (família de les lleguminoses) és de color groc, de simetria bilateral, amb cinc sèpals i cinc pètals de mida diferent. El pètal posterior és molt més gran que els altres. El conjunt dels pètals recorda una papallona. Els dos pètals més interiors estan soldats i formen una mena de tub, la carena. Els estams estan soldats per la base i el pistil sobresurt.
Margaridoia
La flor de la margaridoia (família de les compostes) és, en realitat, una inflorescència, és a dir, un conjunt de flors petites que imita l’aspecte d’una flor individual. Les flors centrals són grogues i presenten els quatre verticils (calze, corol·la, gineceu i androceu). Les flors perifèriques, generalment estèrils, presenten una mena d’ala que és el resultat de la fusió de tres pètals. Tot el conjunt, flors centrals i perifèriques, està envoltat d’unes peces foliàcies que formen l’involucre, que fa la funció del calze de la flor típica.
Fenàs
En la flor del fenàs (família de les gramínies), l’androceu està format per tres estams llargs que sobresurten, al mig dels quals es troba un pistil amb tres estigmes plomosos, que faciliten la captació dels grans de pol·len que els arriben suspesos en l’aire. L’androceu i el gineceu estan protegits per dues fulletes poc vistoses, les glumel·les. Els òrgans reproductors resten ben tancats a dins, i només quan la flor maduri n’emergiran estams i estigmes. Tot el conjunt de flors es distribueix en espiguetes. És una flor adaptada a la pol·linització pel vent.
1.La diversitat i la unitat dels organismes
2.Els nivells d’organització
3.Els bioelements
4.Les biomolècules o principis immediats
5.L’aigua
6.Les sals minerals
7.L’estat fisicoquímic de la matèria viva
8.Els tipus d’enllaços entre les biomolècules
Model informàtic de la molècula de l’apolipoproteïna E (APOE).
Els organismes són químicament molt complexos, tenen una configuració molt organitzada i cada component hi fa una funció específica.
Els éssers vius són capaços d’extreure, de transformar i d’incorporar a les seves estructures la matèria i l’energia del seu entorn, i també presenten la capacitat d’eliminar les substàncies inútils o perjudicials. Aquests processos reben el nom de metabolisme. Els organismes presenten les capacitats de sensibilitat i d’irritabilitat, mitjançant les quals són capaços de respondre als estímuls físics i químics procedents de l’entorn, que canvia contínuament.
El propòsit de la biologia moderna és poder interpretar les propietats de l’organisme a partir de l’estructura de les molècules que el constitueixen.
FRANÇOIS JACOB, La lògica del vivent (1970)
Les fronteres de la vida
Sovint es creu que els organismes necessiten unes condicions físiques i químiques molt estrictes per al seu desenvolupament, cosa que és certa respecte als vegetals i animals superiors, però en el món dels microorganismes s’ha comprovat que certs grups viuen en unes condicions extraordinàriament difícils.
La major part d’organismes de la biosfera viuen a temperatures suaus. No obstant això, els límits tèrmics en els quals es troben bacteris són molt amplis. Per exemple, a les fonts termals dels fons oceànics s’han trobat bacteris que viuen i es reprodueixen a 112 °C. En l’extrem oposat, alguns bacteris viuen a alguns graus sota zero en aigües suficientment salades per no congelar-se.
La pressió a què viuen alguns microorganismes també presenta límits extrems: alguns bacteris creixen a pressions molt baixes, properes al buit, mentre que els organismes dels fons marins poden suportar pressions hidrostàtiques extraordinàries (cal recordar que al mar la pressió hidrostàtica s’incrementa aproximadament una atmosfera per cada 10 metres de profunditat).
L’elevada salinitat tampoc no és un problema per a alguns organismes, que suporten salinitats de més del 30%, com tampoc no ho és la manca d’oxigen, ja que nombroses comunitats microbianes anaeròbies poden viure en absència d’aquest element, i fins i tot n’hi ha algunes que només poden viure si hi falta oxigen lliure.
Durant molt temps s’ha cregut que la vida es desenvolupava en una franja molt estreta de la superfície dels continents (fins a pocs quilòmetres d’altitud i fins a pocs metres de profunditat en el subsòl) i dels oceans (la profunditat màxima dels quals és d’uns 11000 metres). En canvi, s’han descobert bacteris en mostres de roques que procedeixen de perforacions que arriben als 2,8 km de profunditat, on les temperatures són elevades i les pressions litostàtiques extraordinàries, i riques comunitats en les dorsals oceàniques, a milers de metres de profunditat.
Les fronteres de la vida són cada vegada més difícils d’establir.
En la investigació oceanogràfica es fan servir ginys submarins com ara el batiscaf de la fotografia.
Model molecular d’hemoglobina creat per ordinador.
Quans’estudiaelconjuntd’organismes(biosfera)quepoblenlasuperfícieterrestre,destaquenduescaracterístiques:la diversitat ila unitat
Actualmentlabiosferaésformadaperunsquantsmilionsd’espèciesd’organismesqueesdiferenciennotablementperlamida(desdels microorganismesdemenysd’unmicròmetrefinsaalgunsvegetalsi animalsdebastantsmetresdelongitud),perlaformaipelsvariats ambientsonviuen.
Arabé,noobstantaquestaclaradiversitat,quans’estudienelsaspectesquímicsdelsdiferentsorganismes(ésadir,lasevacomposicióiles reaccionsquímiquesquetenenllocenelseuinterior),s’observauna notablesimilitudquímica.Defet,elsorganismessónformatsperles mateixesmolèculesitenenlamateixaconstitució,jaqueprovenende laquímicadel carboni (químicaorgànica),queesdesenvolupaenun medilíquid,l’aigua.Totaaquestaquímicaesprodueixapartird’una organitzacióbàsicaqueanomenem cèl·lula.
De macroscòpic a microscòpic (escala logarítmica).
0,1
Bacteri Mitocondri
Lacomposició,l’estructuraielfuncionamentdelsorganismess’estudiendesdecincnivellsd’organitzacióodecomplexitatdiferents.
A nivellmolecular s’estudiadequinamaneraelsorganismessón formatsperdeterminatselementsquímics(bioelements)queescombinenformantles biomolècules (molèculesbiològiquesoprincipis immediats).Delseuestudisen’encarreguenlabioquímicailabiologiamolecular.
A nivellcel·lular s’estudialacèl·lula,launitatestructural,funcionalireproductoradelséssersvius.Esconeixendostipusbàsicsde cèl·lules:les procariotes (sensenuclidiferenciat)iles eucariotes (amb nuclidiferenciat).Lacitologiailabiologiacel·lularn’estudienlescaracterístiques.
A nivelld’organisme s’estudiadequinamaneraescoordinenles cèl·lules.Hihadosgransgrupsd’organismes:els unicel·lulars iels pluricel·lulars,elsqualspresenten teixits, òrgans i aparells.Lesciènciesqueestudienaquestnivellsón:labotànica,lazoologia,lamicrobiologia,lahistologia,l’anatomia,lafisiologia,lagenètica,l’embriologia,lapaleontologiailataxonomia.
A nivelldepoblació s’estudienelsorganismescomaconstituents d’unapoblació,oconjuntd’organismesd’unaespècie,queviuenen unespaiienuntempsdeterminats.L’evolucióilagenèticadepoblacionsentractenelsaspectesessencials.
Àtom
Finalment,a nivelld’ecosistema s’estudienlesinterrelacionsdels organismesentreellsiambelmedienelqualviuen,ésadir,estudia l’ecosistema:launitatfuncionaldelabiosferaconstituïdaperunconjuntd’organismes(labiocenosi)iunespaiiunescondicionsfísiques iquímiques(elbiòtop).L’ecologias’ocupad’estudiaraquestnivell.
Els bioelements sónelselementsquímicsqueentrenenlacomposiciódelamatèriavivaiquesónnecessarisperalbonfuncionament delsorganismes.
Delcentenard’elementsquímicsconeguts,unstrentasónessencials peralsorganismes.Estractadelsmateixoselementsqueestrobenen l’escorçaterrestre,al’aireialahidrosfera,peròenlamatèriavivaapareixenenproporcionsforçadiferents.
Onzedelsbiolements,elsanomenats bioelementsplàstics, formen mésdel99%delamatèriavivaisónpresentsentotselsorganismes. Elsaltres,elsanomenats oligoelements,estrobenenquantitatsmolt petitesinopasentotselsorganismes.
Sitenimencompteelnombred’àtoms,elsbioelementsplàsticsmés abundantsenelsorganismessón:l’hidrogen(H),l’oxigen(O),elcarboni(C)ielnitrogen(N).Caltenirencomptequeelsdosprimers elementsformenpartdel’aigua,labiomolèculamés nombrosa.
L’hidrogen ésundelscomponentsdel’aigua,la molèculamésabundantenelsorganismes.Així mateix,ésuncomponentessencialdelamajorpart delesbiomolècules.L’ióhidrogenésl’element reductorennombrosesreaccionsbiològiques.
L’oxigen ésl’altrecomponentdel’aiguaiformapartdelamajoriadelesbiomolècules,generalmentenformadegrupsfuncionals,ésadir, d’agrupacionsd’àtomsqueconfereixenpropietats característiquesalesbiomolèculesorgàniques.Es troballiureiengranquantitatenl’atmosfera.Les plantes,elsanimalsilamajoriadelsmicroorganismesutilitzenl’oxigenperoxidarelsalimentsi obtenirenergia;aquestprocéss’anomena respiracióaeròbia. El carboni constitueixunadesenapartdelpes totaldelsorganismesirepresentaaproximadament el40%delamatèriaseca.Sovintesdiuqueel substratmaterialdelsprocessosvitalsésformatper moltaaiguaicarboni.Elcarboniésunelement nometàl·lic,lleuger,tetravalentiquepotestablir quatreenllaçosambaltresàtomsogrupsd’àtoms. Quanaquestsquatreenllaçosesformenambàtoms ogrupsd’atomsdiferents,elcarbonirepelnom de carboniasimètric.L’enllaçcarboni-carboni,de tipuscovalentimoltestable,permetlaformació decadenesd’àtomsdecarboniqueconstitueixen l’esqueletdelamajorpartdelesmolèculesbiolò-
Composició elemental (en %) de l’atmosfera, la biosfera, la hidrosfera i la litosfera (l’escala és logarítmica).
Biosfera
HOCNCaKSiMgPSAlNaFeTiClBArNe
Hidrosfera
Litosfera
HOCNCaKSiMgPSAlNaFeTiClBArNe
Els bioelements plàstics
Disposició tetraèdrica de l’àtom de carboni: els quatre enllaços covalents es disposen en l’espai cap als quatre vèrtexs d’un teòric tetraedre.
giques.Laprincipalfontdecarbonidisponibleperalabiosferaésel diòxiddecarbonidel’aire.Mitjançantlafotosíntesi,lesplantescaptenaquestcompost,quefanservirpercrearlesbiomolècules,idesprenenoxigen.
El nitrogen formapartdelsaminoàcidsqueconstitueixenlesproteïnesidelesbasesnitrogenadesqueformenelsàcidsnucleics.Malgratqueestrobaengransquantitatsenl’atmosfera,propdel80% delaqualésnitrogenlliure,únicamentunreduïtgrupdemicroorganismes(elsbacterisfixadorsdelnitrogen)sóncapaçosdecaptarelnitrogenatmosfèriciferquelarestad’organismeselpuguin utilitzar.
Elsaltresbioelementsplàstics–elfòsfor(P),elsofre(S),elsodi (Na),elpotassi(K),elcalci(Ca),elmagnesi(Mg)ielclor(Cl)–, malgratquetambésónessencials,estrobenenquantitatsmoltmés baixesiforçavariablesd’unorganismeaunaltre.
El fòsfor ésuncomponentdemoltesbiomolècules,comaraelsfosfolípids,certesproteïnes,elsàcidsnucleics,l’ATP,etc.
El sofre ésuncomponentd’ungrupnombrósdeproteïnes.
El sodi ésuncomponentbàsicdemoltslíquidsorgànicsiésimprescindibleenlaregulaciódelsprocessososmòticsienlaconduccióde l’impulsnerviós.
El potassi ésimprescindibleenelmetabolismevegetalianimal,ja queésnecessarienelcreixementdelesplantesiintervéenlaconducciónerviosa.
El calci formapartdelsossos,delesclosques,delesparetscel·lulars, etcètera.Intervéenlaregulaciódelapermeabilitatdelesmembranes, enlacontracciómuscular,enlaregulaciódelpH…
El magnesi ésuncomponentdelamolèculadeclorofil·la,bàsica peralafotosíntesi.Intervéenlaproducciód’energiaalmúscul,enla transmissiódelsimpulsosnerviosos,etc.
El clor éspresentenlamajorpartdelescèl·lulesiintervéenla regulaciódelapressióosmòtica.
Composició en bioelements del cos humà (per cada 10000 àtoms).
El 99,25% dels àtoms del cos humà són H, O, C i N. El 0,75% que queda correspon a diversos elements, alguns dels quals hi són presents en concentracions molt baixes.
Ca 33 P 23
6.1. Tenintencomptequeelcarboniés,desprésdel’aigua,elprincipalcomponentdelamatèriaqueformaelsorganismes,feslesactivitatsqueetproposemacontinuació:
a)Explicaelsignificatdelesafirmacionssegüents:
–Elcarboniésunelementtetravalent.
–Elcarboniésunelementnometàl·lic.
b)Consultalataulaperiòdicadelselementsidiguesquinésel nombred’ordredelcarboniielseupesatòmic.Quinelementprecedeixelcarboniiquinelsegueix,enaquestataula?
c)Quinaéslaprocedènciadelcarboniqueformalamatèria orgànicadelsorganismes?Explicalarelacióentrelafotosíntesii elcarboni.
d)Dibuixaunacadenalinealdecincàtomsdecarboniiindica quantsenllaçoslliurespresenta.Dibuixatambéunacadenadesis àtomsdecarboniambduescadeneslateralsdedositresàtomsde carbonidisposatsenelscarbonis2i5.
e)Dibuixalesformescícliquesqueespodenderivardelesdues cadenesd’àtomsdecarbonirepresentadesacontinuació:
6.2. Lamajorpartdelesbiomolèculesespodenconsiderarderivades delshidrocarburs.Quinssónelsseusdoscomponents?Transformaen hidrocarburslesduescadenesdecincisisàtomsdecarbonirepresentadesenelsdibuixosdel’activitatanterior.
6.3. Diguesquinssónelsnivellsd’organitzaciódesdelsqualss’estudialacomposició,l’estructuraielfuncionamentdelsorganismes.
6.4. Pelquefaalescèl·lules,quinaéslaprincipaldivisiódelsorganismesqueformenlabiosfera?
6.5. Elsorganismespluricel·lularssónformatsperteixits,òrgansi aparells.Defineixaqueststermesidiguesquinessónlesciènciesque estudienaquellsorganismes.
6.6. Diguesaquinesmolèculeselnitrogenésuncomponentfonamental.Quinaprocedènciatéelnitrogenqueestrobaalesbiomolècules?Quinssónelsorganismesqueintrodueixenelnitrogenalabiosfera?
6.7. Elferroésunbioelementimportant.Consultaunaenciclopèdia iesbrinaaquinamolèculadelasangdelsvertebratsabunda.Quina éslafunciód’aquestamolècula?
Oligoelements
Els hidrocarburs són compostos formats únicament per carboni i hidrogen.
Cadena carbonada saturada amb hidrògens i radicals de metil. Els grups metil estan representats per les rodones de color taronja.
Principis immediats Inorgànics
Orgànics
Aigua
Sals minerals Glúcids
Lípids
Proteïnes
Àcids nucleics
Fórmula, estructura i model molecular del metà.
Segonslasevacomposicióquímica,lesbiomolèculesesdivideixenen dosgrups:lesbiomolècules inorgàniques,queinclouenl’aiguailes salsminerals,ilesbiomolècules orgàniques,queinclouenelsglúcids, elslípids,lesproteïnesielsàcidsnucleics,iquesónformadesper cadenesd’àtomsdecarboni.
Lamajorpartdelesbiomolèculesorgàniquessón hidrocarburspolifuncionals.Els hidrocarburs,oelsseusderivats,sóncompostosformatspercarboniihidrogen.L’esqueletdelshidrocarbursésformatper cadenesd’àtomsenquèelsenllaçossónsaturatsperàtomsd’hidrogen.Esdiuenhidrocarburs polifuncionals aquellsquetenendoso mésàtomsd’hidrogensubstituïtsper grupsfuncionals (alcohol,aldehid,carbonil…).
Elsprincipisimmediatsorgànicsescaracteritzenpelsàtomsqueels formeniperlasevadisposicióenl’espai.Així,esdiuqueduesbiomolèculesorgàniquessón isòmeres quansónformadespelsmateixos àtoms,algunsdelsqualsestanorientatsdemaneradiferent.Normalment,lesbiomolèculesisòmerespresentenpropietatsfísiquesiquímiquesdiverses.
Els alcans principals
Nom
Metà
Età
Propà
Butà
Pentà
Hexà
Heptà
Octà
Nonà
Decà
Orgànics
CH4
CH3–CH3
CH3–CH2–CH3
CH3–CH2–CH2–CH3
CH3–(CH2)3–CH3
CH3–(CH2)4–CH3
CH3–(CH2)5–CH3
CH3–(CH2)6–CH3
CH3–(CH2)7–CH3
CH3–(CH2)8–CH3
Composició en biomolècules d’una cèl·lula humana (en grams per cada 1000 g de material cel·lular).
Lesclassesprincipalsenquèespodenclassificarlesbiomolècules constitueixenelsdostipusdiferentsdeprincipisimmediats:elsinorgànicsielsorgànics.L’aiguailessalsmineralsconstitueixenelsprincipisimmediatsinorgànics,mentrequeelsglúcids,elslípids,lesproteïnesielsàcidsnucleicsconstitueixenquatreclassesexistentsdeprincipisimmediatsorgànics.
Lamajorpartdelsprincipisimmediatsorgànicstenenestructures gransicomplexes,ambunpesmolecularelevat,is’anomenen macromolècules.Encaraquelesmacromolèculesqueformenelsorganismes
Altres molècules
Glúcids
Lípids
Proteïnes
Aigua
Metabòlits intermediaris
Sals inorgàniques
presentinunagrancomplexitatiunagranvarietat(enl’ésserhumàes coneixen,perexemple,desenesdemilersdeproteïnesdiferents),totes ellessónformadesperunnombrereduït demolèculessenzilles.
Així,perexemple,lamajorpartdelspolisacàrids(elsglúcidsmésabundants)sónformatsperpocsmonòmerssimples,elsmonosacàrids,elmésimportantdelsqualsésla glucosa.
Enmoltslípidselscomponentsfonamentalssónunsquantsàcidsgrassos,laglicerinail’àcidfosfòric.
Toteslesproteïnes,elgrupdemacromolèculesmésvariatiabundant,sónformadesúnicamentpercombinacionsdevint aminoàcidsdiferents.
Elsàcidsnucleics,lesmolèculesquecontenenlainformaciógenètica,sónconstituïtspervuittipusdiferentsdemononucleòtids.Cadascund’ellsésformatperuna basenitrogenada(nomésse’nconeixen cinc),unglúciddecincàtomsdecarboni (laribosaoelseuderivat,ladesoxiribosa) il’àcidfosfòric.
Comaconclusióespotdirque:
a)Elsorganismessónformatsperuna granvarietatdemacromolèculesbiològiques quedesenvolupenfuncionsespecífiques (energètica,dereserva,estructural,reguladora,etc.).
b)Lesbiomolèculesorgàniquessónconstituïdesperlauniód’unnombrereduït (unesquantesdesenes)demolèculessenzilles,idèntiquesentotselsorganismes,que rebenelnomde monòmersessencials. Aquestfetpermetafirmarquetotselsorganismesderivend’untronccomú.
Elsmonòmersessencialssónelssegüents:
–Ribosa,desoxiribosa,glucosa,galactosaifructosa.
–Àcidsgrassos.
–Glicerina.
–Àcidfosfòric.
–Aminoàcids(20dediferents).
–Basesnitrogenades(5dediferents).
Grups funcionals més freqüents en les
orgàniques.
Estructura dipolar de la molècula d’aigua.
Contingut d’aigua en el cos humà (%)
Saliva 99,5
Llet 89
Ronyó 83
Sang 79
Múscul 76
Pell 72
Fetge 70
Cartílag 55
Os 22
Dentina 10
La molècula d’aigua és polar: l’àtom d’oxigen posseeix una càrrega elèctrica negativa, mentre que els àtoms d’hidrogen tenen càrregues positives. Si bé la molècula és elèctricament neutra, la irregular distribució de les càrregues fa que entre les molècules d’aigua s’estableixin atraccions elèctriques que es coneixen amb el nom de ponts d’hidrogen.
L’aiguaéslabiomolèculamésabundantentotselsorganismesiésel medienelqualesdesenvolupenles reaccionsbiològiques.Espotafirmar quenohihavidasenseaigua.
Enelsorganismes,l’aiguaespot trobarenformad’aiguaintracel·lular (enlesdiferentspartslíquidesdela cèl·lula,comaralesquebanyenel citosolielsorgànuls),d’aiguaintersticial (laqueocupal’espaientreles cèl·lules)id’aiguacirculant (laque constitueixelslíquidsorgànics,com aralasaba,lasangolalimfa).Cal considerar,també,l’aiguametabòlica,ques’originadurantlesreaccionsbiològiques.
Elpasdel’aiguapelsorganismes,enelsqualsestrobaenrenovaciócontínua,nomésésunafasedelcicledel’aiguaenlanatura.
funcionsbiològiquesdel’aigua
L’aigua realitzadiversesfuncionsbiològiques:
a)Ésunbondissolvent,especialmentdelscompostosiònics,com aralasal,idelscompostospolars,comaraelssucres.Amblessubstànciesnosolubles,perexemplelesproteïnesielsgreixos,l’aiguaformadispersionscol·loïdalsambfuncionsbiològiquesimportants.
b)Éselprincipalagentdetransportdemoltessubstàncies(nutritives,reguladores,excretores,etc.)ipermetelmovimentdepartícules dissoltes(difusió).
c)Comareactiuquímicfacilitamoltesdelesreaccionsdelmetabolismeiprodueixhidratacions,hidròlisisireaccionsd’oxidació-reducció.
d)Actuacomunexcel·lenttermoregulador,gràciesalesseves característiquestèrmiques,icontribueixalmantenimentdelatemperaturadelsorganismesdavantels canvisdelatemperaturaexterior.
e)Intervéenelmantenimentde l’estructurailaformadelescèl·lules idelsorganismespluricel·lulars, especialmentenlesplantes.
L’aigua
L’aigua és sens dubte el requisit essencial per al nostre tipus de vida. Malgrat que l’evolució ha originat éssers vius que viuen en terra ferma, aquests han de mantenir humit el seu interior. És cert que alguns organismes han desenvolupat sistemes per sobreviure en condicions d’extrema sequera, però és indubtable que els processos de la vida terrestre únicament tenen lloc a l’aigua. És el medi fonamental en què es produeixen les reaccions característiques dels organismes.
Elgrupdeprincipisimmediatsinorgànicsdelessalsmineralsésconstituïtsobretotperclorurs,sulfats,fosfats,carbonats,bicarbonatsinitrats desodi,depotassi,decalci,demagnesi,d’amoni…
Enelsorganismes,lessalsminerals,oelsseusions,espodentrobar:
–en estatsòlid,comaralasílice(SiO2)delesclosquesdelesdiatomeesidelsradiolaris,oelcarbonatielfosfatdecalciqueformen elsossosdelsvertebratsilesclosquesdelsmol·luscos,elsequinoderms ialgunsforaminífers;
–en dissolució enelslíquidsqueconstitueixenelmediintracel·lular ielmediintern;
– combinades performarlesbiomolèculesorgàniques,comésel casdel’àcidfosfòric,queésuncomponentdelsàcidsnucleics,de l’ATP,delsfosfolípids,etc.
Lesfuncionsquedesenvolupenelsionsilessalsmineralsenels organismessónmoltvariadesiimportants.Espodenresumirdela manerasegüent:
a)Funcions estructurals.Lesrealitzenelcarbonatdecalci,elfosfatdecalci,lasílice,etc.,queformenl’endosqueletil’exosqueletde moltsorganismes.
b)Funcions reguladoresdelpH,realitzadesprincipalmentpelgrup fosfatielgrupbicarbonat.Aquestesmolècules(substànciestampó) tenenunefecteestabilitzadorsobreelscanvisdelpH.
c)Funcions estabilitzadores,realitzades,perexemple,perlessals estabilitzadoresdelesdissolucionscol·loïdals,lesqualsimpedeixenque aquestesgelifiquiniafavoreixenquealgunesmacromolèculessiguin solubles.
d)Funcions reguladoresdelsprocessososmòtics idetransport d’aiguaatravésdelesmembranescel·lulars.Elpotassi,perexemple, afavoreixquelacèl·lulacaptiaiguaiqueaugmentilasevaturgència, mentrequeelcalcifal’efectecontrari.
són algues unicel·lulars
e)Funcions específiques.Laconcentraciódeionsdesodiipotassio decalciimagnesi,téunagranimportànciaenlatransmissiónerviosa ien lacontracciómuscular.Algunscationssóncomponentsimprescindiblesde certesmacromolècules,comaraelmagnesienlaclorofil·la(pigmentfotosintètic)ielferroenl’hemoglobinadels glòbulsvermellsdelasang.
Els compostos que tenen una mateixa fórmula molecular, però els àtoms distribuïts d’una manera diferent, reben el nom d’isòmers, i el fenomen rep el nom d’isomeria
6.8. Defineix biomolècula i monòmer.Indicadequinesmolèculesbiològiquesformenpartelsmonòmerssegüents:basenitrogenada,aminoàcid,glicerina,àcidgras,glucosa,nucleòtidiàcidfosfòric.
6.9. Enumeradequinesmaneresl’aiguaéspresentenelsorganismes. Quès’enténperaiguametabòlica?
6.10. Apartdel’aigua,quinéselgrupdebiomolèculesmésabundant enlacèl·lulahumana?
6.11. Explicabreumentlafunciótransportadorailafunciótermoreguladoradel’aiguaenelsorganismes.
6.12. Indicasisóncertesofalseslesfrasessegüents:
a)Enelsorganismesnohihacapelementquímicquenoestrobial’escorçaterrestre,al’atmosferaoalahidrosfera.
b)Lesplantespodenprendreelnitrogendel’atmosfera.
c)Elsprocariotessónelsorganismesformatspermoltescèl·lules.
d)Elshidrocarburssónformatspercarboni,hidrogenioxigen.
e)Elsàcidsnucleicssónformatsperunsmonòmersanomenats nucleòtids.
f)Laglicerinaésuncomponentdelamajorpartdelsglúcids.
g)L’aiguaésunbondissolventdelsglúcidsidelesproteïnes.
Elslíquidsqueformenelmediinterndelsorganismessón dispersions aquoses.Silamidadelespartículesdelafasedispersaésinferiora 1nm,lesdispersionss’anomenen dispersionsvertaderes;sisónmés grans,s’anomenen dispersionscol·loïdals o col·loides. Enlesdispersionsvertaderes,lafasedispersapotserformadaper molècules, dissoluciómolecular,operions, dissolucióiònica.La glucosaformadissolucionsmoleculars,mentrequelessalsminerals, elsàcidsilesbases,acausadelafacilitatambquèesdissocienen ions,formendissolucionsiòniques.
Tipus de col·loides
• Segons les partícules que formen la fase dispersa:
– Macromoleculars (col·loides formats per un sol tipus de molècules de massa molecular superior a 10000).
– Micel·lars (formats per agrupacions de molècules de mida més reduïda, que formen micel·les).
• Segons l’estat físic de la fase dispersa:
– Suspensions (si tenen la fase dispersa sòlida).
– Emulsions (si la fase dispersa és formada per un líquid no miscible amb la fase dispersadora).
• Segons l’afinitat entre les partícules de la fase dispersa i de la dispersadora:
– Liòfils (si l’afinitat és alta).
– Liòfobs (si l’afinitat és escassa o nul·la, o si hi ha repulsió).
• Segons l’estat físic del sistema col·loïdal:
– Sol (és fluid i líquid a causa de l’abundància de la fase dispersadora).
– Gel (és semisòlid i gelatinós).
• En cas que la fase dispersadora sigui l’aigua, els col·loides poden ser:
– Hidròfils (si les partícules de la fase dispersa tenen afinitat amb l’aigua i s’envolten de capes de molècules d’aquesta).
– Hidròfobs (si les partícules de la fase dispersa rebutgen les molècules d’aigua).
Propietats de les dispersions
Viscositat. Resistència d’una dispersió a facilitar el moviment relatiu de les molècules de la fase dispersa.
Adsorció. Procés mitjançant el qual les partícules d’un fluid es fixen a la superfície d’una partícula col·loïdal o a la superfície d’un sòlid.
Moviment brownià. Desplaçament caòtic de partícules col·loïdals en la fase dispersadora a causa del xoc amb les molècules del medi.
Diàlisi. Procés que permet separar les partícules col·loïdals de les no col·loïdals, fent servir una membrana semipermeable. Les membranes biològiques i els ronyons dels animals actuen com a membranes semipermeables.
Osmosi. Tendència a passar dissolvent de la dissolució menys concentrada a la més concentrada, fins a igualar-ne la concentració, en un sistema format per dues dissolucions d’un mateix dissolvent, però de concentracions diferents i separades per una membrana semipermeable. Per pressió osmòtica s’entén la pressió hidrostàtica necessària per impedir el pas del dissolvent a través d’una membrana semipermeable. L’osmoregulació és el manteniment de l’equilibri entre l’aigua i els soluts osmòticament actius davant de les condicions del medi que els envolta. L’osmoregulació inclou els processos de plasmòlisi i turgència. Si la pressió osmòtica del medi extracel·lular és superior a la del medi intracel·lular, l’aigua fluirà des de la cèl·lula a l’exterior (plasmòlisi). En cas contrari, es produirà el procés invers, pel qual entra aigua a la cèl·lula (turgència).
Difusió. És el procés que fa possible la barreja homogènia de les fases dispersa i dispersadora entre fluids. Es deu al moviment continu de les partícules dels fluids. Una part del transport de les membranes biològiques es produeix per difusió, simple o facilitada per algun mecanisme específic que activa el pas de les substàncies.
Un col·loide és una dispersió aquosa en la qual les partícules de la fase dispersa tenen una mida superior a 1 nm.
La superfície del nostre planeta és lleugerament àcida, però la major part dels organismes s’han adaptat a una vida propera a un pH neutre, tan sols una mica més alcalí que l’aigua pura. Els éssers humans bevem i mengem substàncies que tenen valors del pH que van des de 2-3 (vinagre i suc de llimona, per exemple) fins a 8-9 (com ara el bicarbonat de sodi), però a l’interior de les nostres cèl·lules mantenim, com la major part dels organismes, un pH proper a 7,7. Tot i això, la mucosa gàstrica de l’estómac humà suporta secrecions d’àcid clorhídric (de pH 1).
Alguns bacteris, com succeeix sovint amb altres paràmetres vitals, viuen en límits de pH molt més amples. Els bacteris dels sòls viuen amb un pH d’entre 5 i 8; algunes espècies de tiobacils viuen amb un pH d’entre 2 i 5; i els bacteris alcalòfils es desenvolupen més bé amb un pH superior a 10.
Encondicionsnormals,enqualsevolvolumd’aiguahihaunnombre reduïtdemolèculesqueestrobaescindit, ionitzat,endosfragments carregatselèctricament:unambcàrreganegativa(OH)–,anomenat hidroxil o anió,iunambcàrregapositiva(H+),anomenat ióhidrogen o protó
Enunlitred’aiguapura,hiha1/10000000demol(unmolésel pesmolecularexpressatengrams)decadascundelsionsenquèes ionitzal’aigua;aquestvalorespotexpressartambéper1/107 .
El pH ésunparàmetrequímicqueserveixperindicardemanera matemàticalaconcentraciódeprotonsenunadissolució.Enconcret, elpHesdefineixcomellogaritmedecimal,canviatdesigne,dela concentraciómolardeprotons.L’escaladevalorsdelpHdelesdissolucionsvariaentre0i14.
EsdiuquelesdissolucionsambunpH7són neutres,ésadir, tenenlamateixaconcentraciódeprotonsqued’ionshidroxils.Esconsideraquelesdissolucionssón àcides sitenenunpHinferiora7 (concentraciósuperiordeprotons)iquesón bàsiques o alcalines si tenenunpHsuperiora7(concentracióinferiordeprotons).
Els àcids sónsubstànciesque,quanesdissolenenaigua,produeixenunaugmentdelaconcentraciódeprotons.Les bases o àlcalis sónaquellessubstànciesqueenreaccionar ambl’aiguaprodueixen unincrementdela concentraciód’hidroxils,i,pertant,undescensdelaconcentració deprotons.
Dissolució d’amoníac
Dissolució de NaHCO3
Sang humana
Llàgrimes
Llet i saliva
Cervesa
Suc de tomàquet
Vi negre
Vinagre
Suc de llimona
Suc gàstric
1 mol HCl
Moltsprocessosbiològicsimoltesreaccions biològiquesdepenende laconcentraciódeprotons,ésadir,delpH. Elsfluidsdel’interior delescèl·lulestenenun pHlleugeramentalcalí (ambunvaloraproximatde7,7).
Valors del pH d’algunes substàncies.
Performar lesbiomolècules, elsàtomss’uneixenentreells mitjançantdostipusprincipals d’enllaços:l’enllaçcovalenti l’enllaçiònic.
L’enllaçcovalent éselmés abundantenlesbiomolècules iésmoltricenenergia.Es produeixquandosàtoms comparteixenelselectronsdels orbitalsmésexterns.Ésel tipusd’enllaçques’estableix entreelsàtomsdecarboniper formarlescadenescaracterístiquesdelesbiomolècules.Els enllaçoscovalentsentreels àtomsdecarbonitambépoden serdobles,quesónméscurts, mésresistentsiquenopermetenllibertatderotaciódelsàtomsimplicats:elsenllaçostriplessónrarsenlesbiomolècules.
El carboni té una gran facilitat per formar enllaços covalents, tant amb ell mateix com amb altres elements.
L’enllaçiònic éselresultatdel’atraccióelectrostàticaentreàtoms oungrupd’àtomsquehanperdutocapturatelectrons(ions).Els ionsambcàrregueselèctriquesnegativess’anomenen anions,ielsions ambcàrreguespositives, cations.
Entrelesbiomolèculess’estableixendiversostipusd’enllaços,engeneralmésdèbilsqueelsqueuneixenelsàtoms.
Els enllaçosd’hidrogen sónunesforcesd’atraccióelectrostàticaentre l’àtomd’hidrogenparcialmentpositiud’unamolèculaiunàtompetit parcialmentnegatiud’unamolèculaveïna(enelcasdel’aigua,l’oxigen).Elspontsd’hidrogens’estableixen,perexemple,entrelesmolèculesd’aiguaisónelsenllaçoscausantsdel’estructuratridimensional delesproteïnesidelsàcidsnucleics.
Les forcesdevanderWaals sónatraccionsentredipolsinstantanisquepermetenl’atraccióentremolèculesquanestrobenaunadistànciaòptima.Aquesttipusd’interaccióesprodueixentreunamolèculad’unanticòsiladelseuantigenespecífic,oentrelesmolècules decertsenzimsielssubstratsdamuntelsqualsactuen.
Les interaccionshidrofòbiques provoquenl’agregaciódemolèculesd’àtomshidrofòbics,lesquals,enacostar-se,exclouenl’aigua quehihaentreelles.Aquesttipusd’enllaçéscaracterísticdeles molèculesdelípidsqueformenlabicapalipídicadelesmembranes biològiques.
Model d’enllaç doble entre dos àtoms de carboni. A diferència de l’enllaç covalent simple, el doble no permet la rotació entorn de l’eix de l’enllaç.
En el metabolisme, i de manera especial en els processos de captació, emmagatzematge i utilització de l’energia, es produeixen nombroses reaccions d’oxidació-reducció, en les quals intervenen transportadors d’electrons i d’àtoms d’hidrogen, com ara el NAD, la ubiquinona o coenzim Q, els citocroms, etc., que actuen associats a enzims específics, per exemple les deshidrogenases.
Principals tipus de reaccions químiques en els processos biològics
Les nombroses reaccions químiques que integren el metabolisme s’agrupen en famílies. Les substàncies que intervenen en una reacció s’anomenen metabòlits, i les que en resulten, producte final. En general, quan el producte d’una reacció és una molècula més complexa que no pas les inicials, es diu que la reacció és de síntesi; en cas contrari, es tracta d’una reacció analítica. Alguns dels principals tipus de reaccions del metabolisme són:
a) Oxidació-reducció o de transferència d’electrons. L’agent oxidant és el que guanya electrons (es redueix), mentre que l’agent reductor és el que perd electrons (s’oxida). Els oxidants i els reductors actuen segons sistemes o parells reductor-oxidant acoblats (parells redox). Un exemple de parell redox és el sistema ferro (III) – ferro (II):
Fe3+ + e– Fe2+
on el Fe3+ és l’agent oxidant i el Fe2+ és el reductor.
b) Condensació i hidròlisi. En el primer cas es produeix la unió de dos o més metabòlits per formar una molècula més complexa amb l’alliberament d’una molècula d’aigua. En són bons exemples la unió de monosacàrids per formar polisacàrids, o la d’aminoàcids per formar pèptids. La hidròlisi és la reacció inversa, com ara l’obtenció de molècules de glucosa a partir de midó.
Condensació
A + B C + H2O
En la primera fase de la digestió del midó (en la fotografia aliments que en contenen) s’obté glucosa en una reacció d’hidròlisi.
Hidròlisi
Un exemple concret de condensació és l’esterificació, o formació d’èster, per reacció entre un grup carboxil i un grup alcohol. Els lípids del grup dels acilglicèrids es formen per esterificació entre els àcids grassos i la glicerina. Un exemple d’hidròlisi, en canvi, és la saponificació d’un èster en un medi bàsic amb formació de sabons (sals d’àcids grassos).
c) Polimerització o unió de diverses unitats, monòmers, per formar una molècula funcional més gran: el polímer. La unió dels diversos pèptids amb altres molècules (grups prostètics) per formar proteïnes complexes, com ara l’hemoglobina.
d) Isomerització o de reordenació interna dels àtoms d’una molècula per formar un isòmer, substància amb la mateixa fórmula molecular, però amb una arquitectura espacial diferent i amb propietats diferents.
e) Transferència de grups. Traspàs d’algun grup funcional (per exemple, el grup amino, el carboxil, l’alcohol, etc.) d’una molècula a una altra.
A — NH2 + B A + B — NH2
Un cas particular de transferència de grups és la fosforilació o incorporació d’un grup fosfat a una molècula.
6.13. Esmentatressalsmineralsqueforminpartdelsesquelets internsidelsexternsd’algunsorganismes.
6.14. Aquinesbiomolèculesabundenelfòsfor,elmagnesiiel ferro?
6.15. Explicalesdiferènciesentrelesreaccionsd’isomeritzacióide polimerització.Posaalgunexempledecadascunad’aquestesreaccions.
6.16. Diguesquèésunagentoxidantiquèésunagentreductor.
6.17. Indicaaquinafamíliadecompostosestrobenelsgrupsfuncionalssegüents:hidroxil,carboxil,amino,aldehidicarbonil.Després,escriu-nelafórmulaempíricailafórmuladesenvolupada.
6.18. Copiairelacionacadaparaulaamblafrasequeladefineix. Paraules: Col·loide,hidròfob,gel,emulsió,micel·la.
Frases: –Agrupaciódemolèculesdemidareduïda.
–Col·loidesemisòlidogelatinós.
–Dissolucióenlaquallafasedispersaésunlíquidnomiscible amblafasedispersadora.
–Dissolucióamblafasedispersaformadaperpartículesdemida superiora1nm.
–Querebutjal’aigua.
6.19. Indicaalgunadelesfuncionsdelcalcienelsorganismes.
6.20. Diguesquèésunpolímeriexplicaenquèconsisteixenlesreaccionsdepolimerització.Posa’nalgunexemple.
6.21. Indicaquinesdelesreaccionssegüentssóndesíntesi:oxidació-reducció,polimerització,esterificació,isomerització,saponificació, transferènciadegrups.
6.22. Diguesquèésunareacciód’hidròlisiiposa’nalgunexemple.
6.23. QuinaconcentracióiònicaesprencomareferènciapermesurarelpHd’unadissolució?QuinvalordelpHtenenlesdissolucions neutres?
6.24. Diguesquèésunasubstànciabàsicaoalcalina.
Estructura cristal·lina iònica del clorur de sodi (NaCl).
6.25. Defineixelstermessegüentsiposa’nexemples: bioelement,macromolècula,monòmersenzill o essencial,àlcali,reaccióanalítica,emulsió,àcid.
6.26. a)Escriulafórmulaquímicailafórmuladesenvolupadadecincgrupsfuncionalsfreqüentsenles biomolècules.
b)Escriulaclassificaciódelsgrupsisubgrupsmés importantsdelsprincipisimmediats.
6.27. a)DefineixquèéselpHiindica’nelvaloren elslíquidsorgànicshumans.
b)Esmentalareaccióinversadelesreaccions següents:desíntesi,d’hidròlisiidereducció.
6.28. Perestimarlaquantitatd’aiguaquehihaen algunsalimentshemfetunsenzillexperimentamb unamostrad’espinacsiunad’embotit.Hempesat cadamostraidesprésleshemdeixatal’interiord’unaestufad’assecament(a60°C).Cadadiahemtornatapesarlesmostresihemobtingutelsresultatsde latauladepeudepàgina,expressatsengrams.Observa’lsicontestaalespreguntessegüents:
a)Representagràficamentaquestsresultats,justificalaformadelsgràficsiexplica’nlesdiferències.
b)Calculaelpercentatged’aiguaquetenien aquestsalimentsabansdeserassecats.
c)Suposaquefemunaltreexperiment:agafem unapatatapeladailapesem;despréslasubmergim enunadissolucióconcentradad’aiguaambsal(per exemple60gdm–3)durantdosdies.Després,latornemapesar.Pesaràmésomenys?Perquè?Isino l’haguéssimpelada?
6.29. L’aiguaésuncompostambpropietatsfrancamentextraordinàries.Lasevadensitat,perexemple, augmentaamesuraqueellíquidesrefreda,però nomésfinsa4°C,temperaturaalaquall’aiguaassoleixlamàximadensitat.Aixòsignificaquel’aigua gelada,a0°C,ésméslleugeraquel’aiguaatemperaturessuperiors.Altrespropietatssingularsdel’aigua sónl’elevadacalorespecíficail’elevadaforçad’adhesióentrelessevesmolècules.
a)Quèsignifiquenlesexpressions«elevadacalor específica»i«elevadaforçad’adhesióentrelesseves molècules»,referidesal’aigua?
b)Quinesconseqüènciestenenlespropietatsde l’aiguasobrelavidadelsorganismesalabiosfera?
c)Perquèesmantélavidaenunllacqueal’hivernesgela?
6.30. Ambunaboladepoliestirèexpanditblanci trossosdefilferro,oambmaterialssemblants,fesun modeld’àtomdecarbonienquèesvegiladisposició delsenllaçoslliures.Aixímateix,fesunmodeldedos àtomsdecarboniunitsperunenllaçdoble.Explica lesprincipalsdiferènciesentrel’enllaçdobleil’enllaç simple.
6.31. Aquingrupdebioelementspertanyelsodi? Explica’nlesfuncions.Quinaéslafontprincipald’aquestbioelementperal’ésserhumà?
6.32. Explicalesdiferènciesentreaiguaintersticial, aiguaintracel·lulariaiguacirculant.
Enquinstipusdereaccionsmetabòliquesl’aigua actuacomareactiuquímic?
1. Sovintescreuqueelsorganismesnecessitenper viureunescondicionsambientalsmoltconcretesirestringides.Llegeixambcuraeldocument«Lesfronteresdelavida»icomentaelslímitstèrmics,depressió,desalinitat,depH,d’altitud,deprofunditatals oceansial’escorçaterrestreenquèéspossibletrobar organismesvius.
2. Defineixambprecisiólesciènciessegüents:bioquímica,genètica,citologia,paleontologia,química orgànicaitaxonomia.
3. Agrupaelselementsdelallistasegüentenbioelementsplàstics(majoritarisiminoritaris)ioligoelements:Cr,N,Cu,Ca,O,Mg,Cl,H,Fe,Na,Si,C, I,P,Sn,S.
4. Enparlardelsorganismesqueformenlabiosfera, esdiuqueduesdelessevescaracterístiquesprincipals sónladiversitatilaunitat.Explicacadascunad’aquestescaracterístiques.
5. Diguesquèésunmonòmeriesmentaquinssón elsmonòmersqueformenelslípidsilesproteïnes. Quinesmacromolèculessónformadespelsmonòmers anomenatsnucleòtids?Perquinesmolèculessenzilles estanformatselsnucleòtids?
6. Diguesquèésunisòmeriescriudosisòmersamb lafórmulasegüent:
7. Quanesdiuqueunadissolucióésàcida?Ineutra? Indicasisónàcidesobàsiqueslessolucionsformades persucdellimona,bicarbonatdesodi,vinagre, hidròxiddesodi,aiguademar,lleixiuicervesa.
8. Elmidóilaglucosasóndosdelsglúcidsmés abundantsiestanmoltrelacionatsentreells,mentre queelsàcidsgrassosilaglicerinasónelsprincipals componentsdelslípidsacilglicèrids.Indicaeltipusi lescaracterístiquesdelesreaccionssegüents:
Àcidgras+glicerinaAcilglicèrid
9. Copialatauladesotaicompleta-laambelnom, lafórmuladesenvolupadailafamíliadebiomolèculesenquèabundenelsgrupsfuncionalssegüents:
Objectius
a) Experimentació pràctica d’alguns dels conceptes bàsics relatius a la fisicoquímica de la matèria viva.
b) Identificació de substàncies i processos químics.
c) Ús d’utillatge i tècniques bàsiques de laboratori.
d) Preparació de dissolucions i reactius.
e) Disseny d’experiments, comprovació d’hipòtesis, recollida de dades i confecció d’informes.
Material
Genèric
– Ossos nets (de conill, de pollastre…) i closques de mol·luscos.
– Esquelet d’eriçó de mar, ou de gallina, pastanagues, llet, vi, lleixiu i llimona.
– Cristal·litzadors i altres recipients de vidre.
– Tubs d’assaig, gradetes, comptagotes i pinces.
– Tub de vidre de 0,5 cm de diàmetre i paper de cel·lofana.
– Col llombarda, móres, remolatxa i ceba.
– Refresc carbònic, morters i pipetes.
Productes, utillatge i reactius
– Àcid clorhídric 2 mol dm–3 i àcid clorhídric 0,5 mol dm–3 .
– Àcid acètic i aigua destil·lada.
– Nitrat de plata 0,5 mol dm–3
– Sucre (sacarosa) i sal comuna (clorur de sodi).
– Midó i parafina.
– Paper indicador de pH i lugol.
– Ataronjat de metil (dissolució alcohòlica a l’1%).
– Fenolftaleïna (dissolució a l’1% en alcohol de 50°).
a)Comprovaciódelapresènciadecarbonatdecalci endiversosmaterials
Ambaquestaactivitatpodràscomprovarlapresènciadecarbonatde calcienelsossosdelsvertebrats,enlesclosquesienelsesquelets externsd’algunsinvertebratsienlesclosquesdelsousdegallina. Elcarbonatdecalciésunasalmineralfreqüentenelsesqueletsinterns iexternsdemoltsanimals.Elsàcids,comaral’àcidclorhídric,ataquen elcarbonatdecalciieldissolentotproduintalliberamentdediòxidde carboni(CO2),devegadesdemanerabenvisibleiespectacular(efervescència),segonslareacciósegüent:
CaCO3 +2HCl CaCl2 +H2O+CO2 carbonat àcid clorur aigua diòxid decalciclorhídricdecalci decarboni
Perferl’activitat,necessitaràsdosotresossosllargsifrescos,de pollastreodeconill,bennetsdecarn,closquesdemol·luscos,esqueletsd’eriçonsdemar,unoudegallina,àcidclorhídricdiluït,àcidacètic,unespincesirecipientsdevidre,comaragots.
a)Enunrecipientdevidreambàcidclorhídric(2moldm–3), posa-hiundelsossosllargsideixa-l’hidurantdosotresdies.Passataquesttemps,treul’osdel’àcidambunespinces,renta’lamb aiguaieixuga’l.L’osésaratouiflexibleacausadeladissolució d’unadelessalsmineralsqueelformava.Quina?Onéselcalci?I elscarbonats?
b)Abocaunesquantesgotesd’àcidclorhídricdiluït(0,5moldm–3) damuntlasuperfícienetad’unacloscademol·luscidelesplaques del’esqueletexternd’uneriçódemar.Observaquèpassaifes-nela descripció.
c)Introdueixunoudegallinaenunadissolucióambuns150cm3 d’aiguadestil·ladaiuns50cm3 d’àcidacètic(espotsubstituirper vinagre).Explicalestransformacionsqueexperimentenlespartsde l’ou,ésadir,laclosca,laclara,etc.,desprésquehagiestatsubmergitunesquanteshoresenladissolució.
Elsclorurssónabundantsenelsorganismes.Lasevapresènciaescomprovaafegint-hiunasoluciódenitratdeplata:elsclorursformenamb aquestcompostunprecipitatblancdeclorurdeplata.
Enunasoluciódesalcomuna(clorurdesodi,1moldm–3),afegeix-hi unesgotesdenitratdeplata(0,5moldm–3)icomprovalaformació d’unprecipitatblanc.
c)DeterminacióaproximadadelpHd’algunes substàncies
FentservirpaperindicadordepH,comprovaelvalordelpHdela saliva,lallet,elvinegre,ellleixiu,l’orinaielsucdellimona. Amplialainformacióambaltressubstàncies,comaraaigua,refrescos,etc.iconstrueixundiagramadepHamblaindicaciódelsvalors trobats.
Els indicadors sónsubstànciesquetenenlapropietatd’indicar,mitjançantalguncanvienelseuaspecte,comaraelcolor,siestroben enunmediàcidoalcalí.Algunsindicadors,comaral’ataronjatde metil,sónreactiusquímics,mentrequed’altressónpigmentsvegetals. Algunsdelsmésaparentssónelspigmentsdelacolllombarda,deles móres,delesremolatxes,etc.Enelcasdelpigmentdelacolllombardaestractad’unaantocianina:unglúcidsimpleunitaunasalde polihidroxiflavili.SegonselpHdelmedi,ladistribuciódelacàrregapositivadelflavilivariaperressonànciaiaixòlifavariarelcolor.
Preparaunteisucsdecolllombarda,móres, remolatxa,ceba,etc.aixafantunamicad’aquests ingredientsenunmorterambaiguadestil·lada. Ompletrestubsd’assaigpercadaundelssucsque haspreparatifeselmateixambl’ataronjatdemetil ilafenolftaleïna.Reservaundelstubsdecadasubstància,queetservirandecontrol.
Delessubstànciesquehasanalitzatenl’apartatB(àcidclorhídric, refresccarbònic,lleixiu,etc.)algunessónbàsiquesialtresàcides. Escull-neunadecadaiambunapipetaafegeix–peracadasuc–unes gotesd’àcidalsegontubiunesgotesd’àlcalialtercer.
Despréscopialataulasegüentiomple-la.
Col llombarda
Móres
Suc de ceba
Fenolftaleïna
Te (infusió)
Ataronjat de metil
e)Lapressióosmòtica: construcciód’unosmòmetre
Ésrelativamentfàcilconstruirun«aparell»indicadordelesvariacionsdelapressióosmòticaambunapastanaga,queproporciona bonesindicacionsdelfuncionamentdelesmembranesdelescèl·lules vegetals.
Agafaunapastanagagrossaifes-hi,alapartsuperiorisenserebentar-la,unacavitatd’algunscentímetrescúbics.Omplelacavitatamb unasolucióconcentradadesacarosaidespréstapa-laambuntapde suroperforatdelqualsurtiuntubdevidre.Sieltapnoajustabé, calsegellarlesvoresambparafina.Acontinuació,submergeixlapastanagaenungotpled’aiguadurantunesquanteshores.Transcorregutaquesttemps,esbrinaquèhasucceïtiperquè.Redacta’nun informe.
Ambunpaperdecel·lofanapotscomprovarquinesmolèculessón capacesdetravessar-neelsporus.Fesservir,perexemple,midóisal comuna.
PreparaunasolucióconcentradadeNaCl(40g/l)i,encalent,afegeix-himidó.Després,fesunabossaambelpaperdecel·lofanaiposa-hi unamicadelasolució.Evitantqueelcontingutvessi,suspèn-hoa l’interiord’ungotambaiguadestil·lada.
Alcapd’unaestona,comprovasilasaloelmidóhantravessat lamembrana.Com?Elmidóestenyeixdeblauamblugol:afegeix algunesgotesd’aquestreactiual’aiguaicomprovasilareaccióés positiva.Percomprovarsihapassatelclorurdesodi,afegeix-hi unesquantesgotesdenitratdeplata,queenpresènciadelclorur dónaunprecipitatblancdeclorurdeplata.Anotaelsresultatsi comenta’ls.
1.Lacomposicióiles característiquesdeles proteïnes
2.Elsaminoàcids
3.L’enllaçpeptídic
4.Funcionsbiològiques delesproteïnes
5.L’estructura delesproteïnes
6.Elsenzims: catalitzadorsbiològics
Imatged’ordinadordel’estructuradela proteïnad’origenvegetal α -monocarina.
Lesproteïnessónlesbiomolèculesquepresentenunadiversitatd’estructuresidefuncionsmés àmplia.Estanimplicadesentotselsprocessoscel·lulars:duplicaciódel’ADN,transcripciód’aquest al’ARN,síntesidelesbiomolècules,obtenciód’energia,transport,regulació,protecció…
Adiferènciadelsglúcidsidelslípids,quesónpràcticamentidènticsenlesdiferentsespèciesanimalsivegetals,lesproteïnessónmolèculesespecífiques:cadaespèciesintetitzalessevesproteïnes,sovintdiferentsdelesd’altresespèciesi,finsitot,algunesproteïnessónexclusivesdecada individu.Lamajorpartdelesmutacionsesmanifestenenformadecanvisenlaseqüènciadels aminoàcidsdelesproteïnes.
Alarecercadelsecretdelavida,vaigcomençarlamevacarreraenelmarcdelahistologia.Pocsatisfet amblainformacióquelamorfologiacel·lularpodiaproporcionar-mesobrelavida,vaigpassaralafisiologia.Lavaigtrobarmassacomplicadaiemvaigdirigircapalafarmacologia,laqualigualmentresultàmassacomplicada.Llavors,emvaigpassaralabacteriologia;peròelsbacteriseren,també,massacomplexosivaig descendiralnivellmolecular,onvaigestudiarlaquímicailaquímicafísica.Desprésdevintanysdetreball, vaigarribaralaconclusióquepercomprendreelqueéslavidahaviadebaixarfinsalnivellelectrònic,al móndelamecànicaondulatòria.Peròelselectronsnoméssónelectronsinotenenvidaenabsolut.Mentrestant,evidentment,heconsumitlavida;sem’haescapatentreelsdits.
Les proteïnes sónprincipisimmediatsorgànicsformatspercarboni (C),hidrogen(H),oxigen(O)initrogen(N),quemoltsovintcontenensofre(S).Algunesproteïnescontenentambéfòsfor(P).Eltermederivadelgrec proteios,quesignifica‘primari’,comaal·lusióala sevagranimportànciabiològica.Tambés’hananomenat pròtids. Químicament,lesproteïnessónpolipèptids,ésadir,llarguescadenesd’aminoàcids (desdepropdecentaalgunsmilers)unitsmitjançant enllaçospeptídics ,ambunpesmolecularmoltelevat.Estracta demolèculesforçafràgils,lesquals,ambl’acciódelacalor,deles variacionsdelpH,del’altasalinitat,etc.,sofreixenalteracionsdel’estructura,delespropietatsfísiquesidelesfuncionsbiològiques.Aquest procéss’anomena desnaturalització .
Lesproteïnessónlesmolèculesmitjançantlesqualss’expressala informaciógenètica.Aquestainformació,contingudaenlaseqüència del’ADN,és,bàsicament,informacióperalasíntesideproteïnes.
Lesproteïnessesintetitzenenels ribosomes d’acordamblainformacióqueconté l’ADNiquetransmetl’ARNmissatger.Moltesproteïnesacabendemadurarenelreticleendoplasmàticrugósienelcomplexde Golgi.Lesproteïnessónlesbiomolèculesmés variadesimésabundantsenlescèl·lules.Un simplebacterientémilersdediferents.
S’anomenen holoproteïnes lesque nomésestanformadesperaminoàcids.En canvi,les proteïnesconjugades o heteroproteïnes tenenunapartdelasevamolècula,el grupprostètic ,denaturalesaquímicadiversa.
Cèl·lulaalmicroscopielectrònicde transmisió.Destaca,al’esquerra,elnucli i,alcentre,undictiosoma.
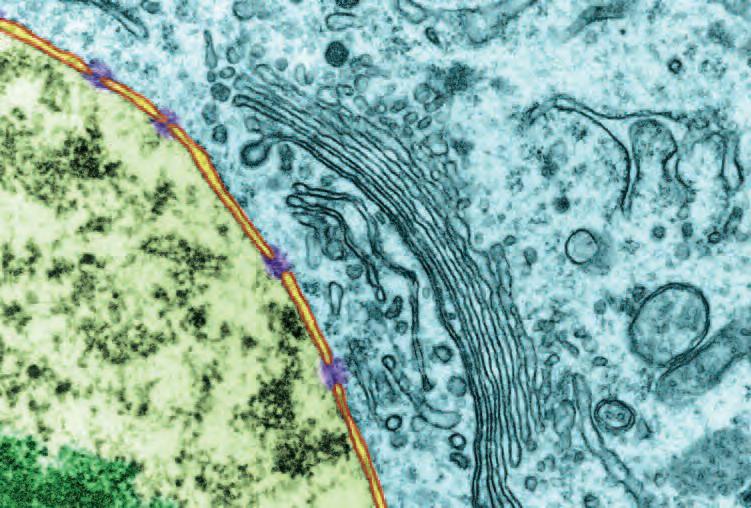
Fórmulageneralimodel estructurald’unaminoàcid
Daminoàcid
Elsaminoàcidspresentenquiralitat:el carboni α éselcentrequiral.Els aminoàcidsdeconfiguracióLtenen,en lasevarepresentacióplana,elgrup aminodisposatal’esquerradelcarboni α,mentrequeelsdeconfiguracióDel tenenaladreta.Totselsaminoàcidsde lesproteïnessóndetipusL.
Els aminoàcids sóncompostosorgànicscaracteritzatsperpresentar, comamínim,ungrupaminobàsic(–NH2)iungrup carboxil àcid (–COOH).Estracta,doncs,decompostosamfòters:enmediàcid tendeixenacomportar-secomabasesienmedibàsiccomaàcids.
Toteslesproteïnesdelsorganismes,desdelsbacterisméssimples finsalsvertebratsmésgrossosicomplexos,sónformadespercombinacionsdiferentsdelsmateixos20aminoàcids.Encadascund’ells,tret delaprolina(enrealitat,uniminoàcid),hihaunàtomdecarboni central,anomenat carboni α ,unit,llevatelcasdelaglicina,aquatregrupsdiferents(és,doncs,asimètric).
Elsquatregrupsques’uneixenalcarboniasón:elsjaesmentats grupaminoigrupcarboxil,unàtomd’hidrogeniungrupanomenat cadenalateral o radical (–R).Els20aminoàcidsdelesproteïneses diferencienentreellsperlanaturalesaquímicadelescadeneslaterals. Aquestfetpermetclassificar-losdediversesmaneres.Unadelesdivisionsmésempradeséslaquetéencomptelanaturalesahidrofòbica ohidrofílicadelradicali,enaquestdarrercas,sielradicalésàcid, bàsiconeutre.
Tanmateix,aquestesclassificacionsnosónexactesperquèlesclasses queestableixennosóndeltotexcloents.Aixòvoldirquehihaaminoàcidsambpropietatspocmarcadesodetransicióque,defet,escauen amésd’unacategoria.Així,perexemple,laglicinapresentaungrup radicalmassapetitperinfluirrealmentsobrelapolaritatdelsgrups aminoicarboxil;l’alaninaenrealitatéspochidròfoba;laserinaila treoninasónelsmenyspolarsdelgrupdelspolars,etc.
Abandadels20aminoàcidsqueformenpartdelesproteïnesde lescèl·lules,hihamoltsaltresaminoàcidsquetenenunesfuncions biològiquesimportants,comaral’ornitina,la β -alanina,etc.
Elsaminoàcidssón ionshíbrids odipolars,ditstambésubstàncies amfòteres, perquèespodencomportarcomaàcids(enmedibàsic)icomabases (enmediàcid).Enrealitat,però,cadaaminoàcidtélasevaespecialconfiguracióicàrregaelèctricaquelivedonadaperlanaturalesadelgrupradical.Aquestfetdeterminaperacadaaminoàcidun puntisoelèctric diferentqueésunvalordelpHperalquallamolèculanopresentacàrregaelèctrica(éselpHenquèlescàrregueselèctriquess’equilibren),demaneraque siaaquestpHl’aminoàcidestrobaal’interiord’uncampelèctricnoesdesplaça.
Elsmètodesd’electroforesi esbasenprecisamentenlacapacitatdelsaminoàcidsdedesplaçar-seal’interiord’uncampelèctricavelocitatsdiferents,
enfunciódelacàrregailagrandària.Aquestatècnicapermetsepararmesclesd’aminoàcids(ipertantdeproteïnes)que,perlasevacàrregaelèctrica, esdesplacencapal’ànodeocapalcàtodequan ladissolucióenquèestrobenéssotmesaaun campelèctric.Constadeduesfases:
a)Sesituenlesmostressobreungelporós (acrilamida,midó…)queéssotmèsaun campelèctricdurantuntempsT.ElpHdel medi,latexturadelgeldesuport,laintensitatiladiferènciadepotencial,comtambéla duradadelaprova,determinaranelgraude desplaçamentiseparaciódelesmostres.
b)Després,unatincióambuncolorant específicenunacubetaderevelatpermetrà identificarelsdiferentsaminoàcidsjaseparats.
Unasegonatècnicadegranaplicaciópera laseparaciód’aminoàcidsiproteïnesésla cromatografia. Talcoms’explicaenl’apartatde pràctiques(enlapàgina228)estractad’un mètoded’anàlisibasatenlapercolaciód’una mesclaproblema,enfaselíquidaogasosa,al llargd’unafaseestacionària(unsòlidoun líquidqueimpregnaunsuportinert).Enuna cromatografia,elscomponentsdelamesclase separend’acordamblasevadiferentvelocitat demigracióatravésdelafaseestacionària.
Elèctrode
Lesmolèculesambcàrregaelèctricaes podensepararperelectroforesi (il·lustraciódel’esquerra). Lacromatografia(il·lustraciódesota),en canvi,separaelscomponentsd’una mesclad’acordamblasevadiferent velocitatdemigracióatravésd’unafase estacionària.
Feneduresperposar-hilesmostres Bandahumida
Elèctrode
Gel
Soluciótamponada
Bandesdecolorquemostren laposiciórealdelesmostres desprésdelaprova Posicióoriginal delesmostres Líquidderevelat (contéun colorant específic)
Gel
Cubetaderevelat
Elsaminoàcidspodenunir-seentreellsperformarcadeneslinealsmitjançantuntipusd’enllaçmoltrígid,anomenat enllaçpeptídic .Enla formaciód’aquestenllaçesdesprènunamolèculad’aigua:elgrupcarboxild’unaminoàcidcedeixungruphidroxil(–OH)ielgrupaminod’unsegonaminoàcidcedeixunhidrogen.Entreelsdosresidus delsaminoàcidss’estableixunenllaçdetipuscovalent.
Ressonànciadel’enllaçpeptídic(totsels àtomssesituenenunmateixpla).
Formació d’un dipèptid
Estructura tridimensionalde l’enllaçpeptídic
Enllaç peptídic
Grup amino (primer aminoàcid)
Grup carboxílic (darrer aminoàcid) Dipèptid
Unpentapèptid:serilgliciltirosilalanil-leucina
Enllaçpeptídic. Nopermetgirs.
Grup amino
(primer aminoàcid)
Grup carboxílic
Seqüènciadelainsulina.
Elcompostformatperlauniódedosaminoàcidss’anomena dipèptid ipresentaungrupaminoiungrupcarboxilenelsseusextrems. Elsdipèptidspodenenllaçar-seambaltresaminoàcidsperformard’aquestamaneraels tripèptids, tetrapèptids,etc.Elspèptidsquetenen finsadeuresidusd’aminoàcidss’anomenen oligopèptids,mentreque elsqueentenenunnombresuperiorsónels polipèptids.Lamajorpart delesproteïnessónpolipèptidsdemésdecentresidusd’aminoàcids.
Talcommostralafiguradelapàginaanterior,l’enllaçpeptídicestà enressonànciacontínuaentrelaformasimpleiladoble.Enqualsevolcas,estractad’unenllaçrígid:elnitrogendelgrupaminoielcarbonicarboxílicnopodengirarentresi.Elsúnicsgirspossiblessónels delscarbonis α .Peraltrabanda,elsquatreàtomsimplicatsenl’enllaç peptídicsesituenenunmateixpla.Totsaquestsfetstenenunagran transcendènciaenl’estructuratridimensionaldelesproteïnes.
Algunesimportantsmolèculesbiològiquesformadesperaminoàcidsnosónen realitatproteïnes,sinó pèptids. Ésadir,estanformadesperlauniód’unnombrecurtd’aminoàcids(curtencomparacióamblaquantitatd’aminoàcidsque formenpartdelesproteïnes).
Hormones tandestacadescomaralainsulina(51aminoàcids),elglucagó (29aminoàcids),l’oxitocina(9aminoàcids),lavasopressina(9aminoàcids)o laACTH(39aminoàcids)sónpèptids.Tambésónpèptidsl’amiloide-beta, molèculaimplicadaeneldesenvolupamentdelamalaltiad’Alzheimeriles endorfines (aquestesformadesper5omésaminoàcids).Lesendorfinesfande moduladoresdelfuncionamentdelessinapsiscerebralsquefuncionencoma analgèsicsnaturalsambunaacciósimilaraladelesdroguespresentsenl’opi. Tambésónpèptidsmoltes toxines d’algunsboletscomaral’amatoxina(8aminoàcids)delafarinerabordai,enrealitat,tambéhosónlapenicil·linaialtres antibiòtics
Curiosament,moltsd’aquestspèptidssóncíclics(ésadir,elgrupaminodel primeraminoàcids’uneixalgrupcarboxilterminal)isovintcontenenalguns aminoàcidsdiferentsdels20queformenpartdelesproteïnes.
7.1. Quinaésladiferènciamésbàsicaentreels20aminoàcidsdeles proteïnes?
7.2. Escriulafórmulad’unL-aminoàcidiexplicaquinsgrupss’uneixenalcarboni α.
7.3. Explicaquèsónelsaminoàcidsessencialsperal’ésserhumà. Esbrinaenquinesproteïnesienquinsalimentsestroben.
7.4. Quèdeterminal’ordreenquèestrobendisposatselsaminoàcids enunaproteïna?
7.5. Defineixelsconceptessegüents:enllaçpeptídic,dipèptid,oligopèptidipolipèptid.Quinéselsignificat d’amfòter i amfipàtic ?
7.6. Copiaaquestquadreicompleta’l.
Aminoàcid Abreviatura Símbol Ésessencial?(Sí/No)
Valina
Metionina
Àcidaspàrtic
Lisina
Alanina
Glicina
Glutamina
Triptòfan
7.7. QuintipusdebiomolèculessónlessubstànciesproblemaA,B,C iD,d’acordambelsresultatsobtingutsenlesdiferentsprovesdelaboratoriqueetdetallemalatauladelcostat?
7.8. Copiaaquesttexticompleta’nelsespaisbuitsamblesparaules següents: ribosomes , vint , aminoàcids , amino , específiques , diferents.
Elsenllaçospeptídicsuneixenels…performarelspèptids.Aquestaunióesprodueixals…delescèl·lulesd’acordamblainformaciógenèticacontingudaenl’ADN.Lesproteïnessónmolècules…: cadaespèciesintetitzalesseves,…delesd’altresespècies.Enla granvarietatdeproteïnesqueformenelséssersvius,únicamenthi ha…aminoàcidsdiferents.Cadascunésuncompostquímicamb ungrup…iungrupcarboxil.
Solubleenaigua
Solubleen dissolventsorgànics
Gustdolç
Fehling
Biuret
Lesplomesilesaltresformacions dèrmiquessónriquesenproteïnes estructuralsdelgrupdelesceratines.
Lesproteïnesdesenvolupenfuncionsessencialsentoteslescèl·lules. Lamajorpartd’aquestesfuncionsestanrelacionadesamblafacilitat quetenenlesmacromolèculesproteiquesperunir-sedemaneraselectivaaaltresmolècules.
Entrelesprincipalsfuncionsbiològiquesdelesproteïnes,calesmentarlessegüents:
a) Funcióestructuralideprotecció
Certesproteïnes,comaraelscol·làgens,leselastines,latubulina, lesceratines,etc.,formenestructuresdesostenimentidesuportmecànic(membranacel·lular,citoesquelet,etc.)ideprotecció(pèls,plomes,etc.)denombrososorganismes.
b) Funciócatalíticaoenzimàtica
Esconeixenalgunsmilersdeproteïnesqueactuencomacatalitzadorsbiològicso enzims ,ésadir,queaccelerendemanera extraordinàrialavelocitatdelesreaccionsquímiquesqueesdesenvolupendinslescèl·lules.Entrelesproteïnesambfunciócatalítica,calcitarlescatalases,leshidrolases,leslipases,lesribonucleases,etc.
c) Funciótransportadora
Algunesproteïnestenengranfacilitatperunir-seaaltresmolèculesiions,comaralespermeases,pertransportar-los.Ensónbons exemples:algunesdelesproteïnesqueformenlamembranacel·lular iintervenenenl’entradailasortidadematerialsalacèl·lula;l’hemoglobinadelasang,quetransportaoxigendelsòrgansrespiratoris alescèl·lules;leslipoproteïnes,quetransportenlípidsdelfetgeals teixits,etc.
d) Funciónutritivaidereserva
Elvalornutritiudelesproteïnesdepèndelaquantitatidelaproporciódelsaminoàcidsquecontenen.Encondicionsnormals,les proteïnesnotenengaireimportànciacomamaterialsenergètics,però perlacombustiód’ungramdeproteïnas’obtenen5,6kcal,ambun rendimentnet,tanmateix,inferiora4kcal.Proteïnesdegranvalor nutritiusónl’albúminadel’ou,lacaseïnadelallet,lagliadinadeles llavorsdelblat,etc.
e) Funcióreguladoraohormonal
Lesproteïnesreguladorescontrolennombrosesactivitatsmetabòliquescel·lulars,delsteixits,delsòrgans,etc.,comaraelcreixementolareproducció.Entrelesproteïnesambfuncióhormonal destaquenlainsulina(enrealitat,unpolipèptid),queintervéenla regulaciódelcontingutdeglucosaalasang,l’hormonadelcreixement,etc.
f) Funciócontràctil
Algunesproteïnestenenlacapacitatdecontreure’sisónlesresponsablesdelsmovimentsdelscilisidelsflagelsdelescèl·lules,deles fibresmusculars,etc.Entrelesproteïnesquedesenvolupenaquesta funció,calesmentarl’actina,lamiosinailatubulina.
g) Funciódedefensaidereconeixement
Elsanticossosoimmunoglobulinessónproteïnesquesesintetitzen enelslimfòcitsBdelasangiquetenenlafunciód’unir-seespecíficamentaantígensdiversos(virus,bacteris,altresmicroorganismes, gransdepol·len,sang,teixitsaliensisubstànciesdiverses)perneutralitzar-nel’acció.Intervenenenladefensadel’organismecontrales infeccionsienelsmecanismesquereconeixensiunasubstànciadeterminadaéspròpiadel’organismeoliésestranya.Elsanticossossón elsresponsablesdelsprocessosderebuigqueesdonenenelstrasplantamentsd’òrgans.Elfibrinogenilatrombina,proteïnesdelplasmasanguini,intervenenenlacoagulaciódelasang,procésfonamentalperevitar-nelapèrduaquanesprodueixeltrencamentdevasos sanguinis.
h) Funcióhomeostàtica
Intervenenenlaregulaciódel’equilibriosmòticdelescèl·lulesien elmantenimentdelpH.
Elvalornutritiudelesproteïnes
Lesproteïnessónindispensablescomanutrientsplàsticsperalaconstruccióiel mantenimentdelesestructurescel·lulars,perlaqualcosanopodensersubstituïdespercapaltreprincipiimmediat.Enlaproducciód’energia,lesproteïnes desenvolupen,generalment,unpapersecundari,jaqueaquestafunciócorrespon alsglúcidsialslípids.
Lesnecessitatsdeproteïnesdelespersonesdepenenfonamentalmentdel’edat, peròescalculaqueunadietaequilibradahad’inclouredel15%al20%de proteïnes.
Generalment,entreun 5% iun10%delesproteïnesqueingerimtravesseneltubdigestiusenseserassimilades.
Lesproteïnesestanconstituïdespercadenesde20aminoàcidsdiferents,alguns delsquals,elsaminoàcidsessencials,nopodensersintetitzatsperlesnostres cèl·lulesihandeformarpart,necessàriament,deladieta.
Elsaminoàcidsessencialssón,engeneral,mésabundantsenlacarn,enel peix,enelsousienlalletquenopasenelsproductesvegetalsricsenproteïnes, comaraelscereals.Peraquestmotiu,esrecomanaque,proporcionalment,hi hagimésproteïnesd’origenanimalquenod’origenvegetal.
Perquèunadietavegetarianasiguicompleta,ésadir,sensecarènciesnutritiveshadeprocurarunacombinacióacuradadelsalimentsmésdeficitarisen determinatsaminoàcidsambelsqueentenenmés.
Lesproporcionsd’aminoàcidsessencialsquehihaenlesproteïnesdel’oude
Laciènciadelaproteòmica
La proteòmica ésunabrancamolt modernadelabiologiaderivadade l’aprofundimentdelaciènciadela genòmica. Peròmentreaquestaúltimaestudiaelsgenomes(seqüències del’ADN),laproteòmicas’ocupade l’estudidelsproteomes,paraulaque defineixelconjuntdeles proteïnes expressadesperungenoma,ésadir, elconjuntdelsmilersdeproteïnescodificadesiexpressadesperl’ADNd’un organisme.
Finsara,delagranmajoriad’aquestesproteïnesnose’nsapres.Peròsi esconeixenelsgensespotcomençar aconèixerquinesproteïnescodifiquen.Laproteòmicamiradecatalogartoteslesproteïnesqueunacèl·lula sintetitzaiutilitzaenunmomentoaltredelseuciclebiològic.Adiferència delgenoma,elproteomad’una cèl·lulaésdinàmicivariablealllargde lasevavida.
L’objectiufonamentaldel’estudidel proteomaésconèixerlesestructures moleculars–mitjançantl’establiment debancsdedadesestructurals–i,a partird’aquí,mirardededuirlesinteraccionsilesfuncionsquese’nderiven, gràciesal’ús,perexemple,dexips d’ADN.Lesimplicacionsatotsnivells, tambéeneldiagnòsticilateràpia mèdiques,seranmoltprobablement moltimportants.
Elsaminoàcidsquel’organismenopot sintetitzarapartirdemolèculesprecursoresfàcilmentaccessibless’anomenen essencials. Aquestsaminoàcidss’han d’aportarambladietaisónelsvuitsegüents:valina,leucina,isoleucina,lisina, metionina,fenilalanina,treoninaitriptòfan.Elsestudisrecentsensuggereixen unnovè:lahistidina.
Eldenominat valorbiològic delesproteïnesingeridesindicalamesuraenquè sónaprofitadesperl’organisme.Elvalorbiològicdelesproteïnestérelació amblaquantitatd’aminoàcidsessencialsquecontenen,tantpelquefaala quantitatcomalavarietat.Lamancade quantitatssuficientsd’undesolactua comafactorlimitant.Elsméshabituals sónlamancadelisinaenelscerealsiderivatsilademetioninaicisteïnapera carnsilleguminoses.
Gransdesoja
Contingutmitjàdeproteïnesendiferentsaliments (g/100gd’aliment)
Aliment
Mongetes,llenties,cigrons,faves
Carndevedellaoau
Carndeporc
Peix
Ou
Lletdevaca
Cereals
Pa
Patates
Fruitesihortalisses
Contingutdeproteïnes
Necessitatsmínimesdeproteïnes1
Proporciómínimadeproteïnes animals(enrelacióambles d’origenvegetal)necessàries enunadietaequilibrada
7-12anys
13-18anys
Ancià
Donaembarassada
Donaenperíodedelactància
1.Laquantitattotaloabsolutadepènmoltdelamassacorporal.Peraixò,malgratqueal llargdelavidalanecessitatdeproteïnes/kg/diadisminueixrespected’etapesanteriors,en lesdefortcreixement(l’adolescència),lesnecessitatsabsolutesdeproteïnescontinuen augmentant.
gallinaidelalletmaternasóntanequilibradesquepermetenunaprofitament totald’aquestesproteïnes.Diemquetenenun valorbiològic del100%.
Encanvi,enl’altreextrem,lesproteïnesdelagelatina,quenocontenenl’aminoàcidessencialtriptòfan,tenenunvalorbiològicigualazero.Lesproteïnes delblat,alseutorn,tenenunvalorbiològic–respectedelesdel’ouilallet–del 50 %,jaquenoméstenenun50%delalisinanecessària,ilesproteïnesdeles mongetes(lleguminoses)tenenunvalorbiològicdel40%,perquènoméstenen un40%del’aminoàcidessencialmetioninanecessari.Encanvi,perunfeno-
Aminoàcid (mg/gproteïna) Llet humana Llet devaca Oude gallina Carnde vedella Peix (diverses espècies)
Histidina
Isoleucina
Leucina
Lisina
Metionina+ cisteïna
Fenilalanina+ tirosina
Treonina
Triptòfan
Valina
Valorbiològic enratolins
Gradeblat Gra d’arròs integral Gradesoja
(*)Aminoàcidnutricionalmentlimitantquanl’alimentesmentatconstitueixl’únicafontproteicadelrègimalimentari.
mende complementació,lamescladeproteïnesdiferentsmilloraelconjunt: unamesclaapartsigualsdeblatimongetestéunvalorbiològicdel70%.
Enelspaïsospobres,lesdietessóndeficitàriesenproteïnes,tantd’origen animalcomvegetal;enelspaïsosdesenvolupats,encanvi,nohiacostuma ahaverdèficit,excepteenaquellscasosdepersonesqueacostumenaferdietesmoltdesequilibrades,comaralesquemengenquantitatsexcessivesde sucres.
Caltenirencomptequelesproteïnesespodendestruiramblacalor,segons quinasiguilamanipulacióolapreparacióqueesfacidelsaliments.Sibéaquest fettéunaimportànciarelativaendietesque,comlesdelamajorpartdelagent delnostrepaís,tenenabundànciadeproteïnes,potserperillósendietesmésajustades,comaraalgunesdietesvegetarianes.
Proteïnesd’origenanimal
Proteïnesd’origenvegetal
Composicióenaminoàcidsivalor biològicdelesprincipalsproteïnes alimentàries. (Font:FAO/OMS)
a)Consumdeproteïnes(g/dia/habitant). b)Consumdecarn(kg/any/habitant).
Elfildeltelèfonrepresentaunabona analogiaperentendrequèésl’estructura primària(a),secundària(b)iterciària(c) delesproteïnes.
L’estudidelesproteïnes,formadespercadenesd’aminoàcidsopolipèptidsambunadisposiciótridimensionalmoltcomplexaqueendeterminalespropietats,hapermèsdistingir-nequatrenivellsestructurals:
–L’estructuraprimària d’unaproteïna,o seqüència,indicaquants aminoàcidslaformenienquinordreestrobenenllaçatsmitjançantl’enllaçpeptídicentreelsgrupsaminoicarboxil.Laseqüènciadelesproteïnesestàcodificadagenèticament.Escontenenenlaseqüènciadebases del’ADN.Laseqüènciad’unaproteïnadetermina,encondicionsfisiològiques,elplegamentdelacadenad’acordambunaconformaciónativa(estructuressecundària,terciària…).Laseqüènciadelesproteïness’escriucomençantperl’aminoàcidportadordel’extremaminolliure.
–L’estructurasecundària ésladisposicióenl’espaidel’estructura primària:indicacomesdisposenenl’espaielsaminoàcidsconsecutius.Elsdostipusprincipalsd’estructuressecundàriessónl’hèlix α i l’hèlix β ,odefullplegat.Aquestesestructuress’estableixenperlesafinitatsielsenllaçosdèbils(sobretotelsd’hidrogen)queesprodueixen entreelsdiferentsradicals.Untercertipusésl’hèlixdelcol·lagen,formadapertrescadenesenrotlladesconjuntament.
–L’estructuraterciària mostracomesdoblegal’estructurasecundàriad’unaproteïna.Aquestnivellestructuralindicaquinaéslaposiciópelquefaal’espaidelsaminoàcidsnoconsecutius.Teninten comptelesestructuressecundàriaiterciària,lesproteïnespresenten dostipusdeconformacions:la fibrosa,querecordaunacorda,ila globular,ques’assemblaauncabdellienfacilitalasolubilitat.Elplegamenttridimensionaldel’estructuraterciàriaésdegutalesatraccions ques’estableixenentreelsgrupsradicalsd’aminoàcidsallunyatsentre si,elsqualsquedenunitsperenllaçosd’hidrogen,pontsdisulfur,forcesdevanderWaals…
–L’estructuraquaternària lapresentenlesproteïnesformadesper duesoméscadenes,igualsodiferents,depolipèptids(proteïnes oligomèriques)iindicacoms’uneixenentreelleslescadenesd’aminoàcidso monòmers.
Lesconformacionsnativesdelesproteïnessónmoltsensiblesalscanvisdel’entorn.Ladesorganitzacióolamodificaciódel’estructuramoleculars’anomenadesnaturalitzacióicomportalapèrduadel’activitatbiològicad’aquestesmolècules.Elcanviqueesprodueixdurantladesnaturalitzaciópotserirreversible,sihaestatmoltsever,oreversible,ien aquestcasespotrecuperarlaconformaciódelaproteïna.Ladesnaturalitzaciónoafectanielsenllaçospeptídicsnilaseqüènciaol’estructuraprimàriadelesproteïnes.AlgunsdelsagentscausantsdeladesnaturalitzaciósónlesvariacionsimportantsenelpH,l’augmentdelatemperaturaolapresènciadecertessubstànciesquímiques,comaralaurea.
Estructura secundària enhèlix α
Estructura primària
Estructura secundària
Estructuraterciària
(quemostraunpontdisulfur)
(alscolzesespotveure l'estructurasecundàriaß)
Pontd’hidrogen
Diàmetre:1,05nm
Enllaçpeptídic

3,6residus d’aminoàcid pervolta
Residu d’aminoàcid

Residu d’aminoàcid
Estructura secundàriaen fullplegato làminaß
Hidrogen Carboni
Nitrogen Oxigen
Enllaçpeptídic
Pontd’hidrogen
Esquemadelaconformació tridimensionaldelesproteïnes.
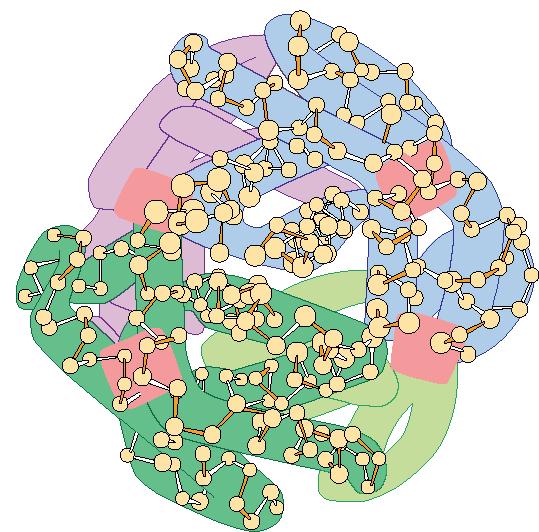
Estructuraquaternàriad’unaproteïna.
L’hemoglobinailamioglobina, proteïnestransportadoresd’oxigen
Enelsanimalspluricel·lulars,l’aparell circulatoris’encarregadetransportar l’oxigendesdelspulmons,odesdeles brànquies,finsatotselsteixits.Enels vertebrats,lafunciódetransportde l’oxigenlaportenatermeelsglòbuls vermells,oeritròcits.Enelcoshumà, perexemple,hihauns5milionsd’eritròcitspermm3 desangi,entotal, enunapersonad’uns65kgn’hideu haveraproximadament2,5 × 1013
Cadaeritròcitésundiscbicòncauque contéenelseuinterioruns3000milionsdemolèculesd’hemoglobina. L’hemoglobinaésunacromoproteïna porfirínicaambungrupprostètic,el quals’anomena gruphemo icontéun àtomdeferro.
Aquestgrupprostèticésfonamental enlaunióoxigen-hemoglobina. Lafunciódelamioglobina,ambel mateixgrupprostètichemo,ésemmagatzemaroxigendinslescèl·lules delsmúsculsifacilitar-neladifusió.
5.1.Proteïnesfibroses
Les proteïnesfibroses sónmoltestables,duresi insolublesenelmedicel·lular.Lescadenespolipeptídiquesquelesformenestandisposadesde maneraparal·lelaiformenfibresolàmines.Estrobenfonamentalmentenelsteixitsanimalsi,en general,desenvolupenfuncionsestructuralside protecció.
Les α-ceratines tenenunagranresistènciamecànicaiabunden,perexemple,al’estratcornidela pelldelsvertebrats,alspèls,alesplomesiales ungles,banyesipeülles.Sónriquesensofre.Altres ceratinessónméstovesiflexibles,comaralafibroïnadelaseda,segregadapelcucdeseda.
Les elastines sónforçaelàstiquesiestrobenen elsteixitsconjuntiuselàstics,perexempleelsque formenelstendonsilligaments,itambéalesparets delsvasossanguinis.
Els col·làgens sónlesproteïnesquemésabundenenelsvertebrats. Elscol·làgensestrobenenelsteixitsconjuntiusd’òrgansmoltdurs, comaralesdents,lamatriudelsossos,elscartílags,etc.,oresistents alatracció,comaraelstendons.Percocció,elscol·làgensestransformenen gelatines,barregessolublesdepèptidsqueesfanserviren alimentació.
Les proteïnesglobulars sónlesformadespercadenesdepolipèptids plegadessegonsconformacionsmésomenysesfèriques.Engeneral, sónforçasolubles(enfunciódelasevamassamolecular),presenten unagranactivitatbiològica(lamajoriadelsenzimsidelsanticossos sónproteïnesglobulars)itenenunaltvalornutritiu.
Les histones sónlesproteïnesbásiquesque,associadesal’ADN, formenlacromatinadelnuclicel·lular.
Les prolamines (gliadina,zeïna,etc.)ilesglutenines(glutenina) abundenenlesllavorsdelscereals.
Enelgrupdeles albúmines ,hihaproteïnesambfunciódereservanutritiva(l’ovoalbúminadelaclaradel’ouolalactoalbúminade lallet,perexemple)oambfunciótransportadora(laseroalbúmina delplasmasanguini,etc.).Tambéformapartd’aquestgruplaglobina,constituentbàsicdel’hemoglobina.
Les globulines sónlesproteïnesglobularsquetenenunpesmolecularméselevat,comaralesseroglobulinesdelsèrumsanguini,que inclouenlesimmunoglobulinesoanticossos,ielfibrinogen,queintervéenlacoagulaciódelasang.
5.3.Lesheteroproteïnes(proteïnesconjugades)
Les heteroproteïnes,o proteïnesconjugades,estanformadesperuna fraccióproteica (constituïdaperproteïnesglobulars)iperuna fracció noproteica,anomenada grupprostètic.Segonslanaturalesaquímica delgrupprostètic,espodendistingirdiversostiposd’heteroproteïnes:
– Glucoproteïnes :elgrupprostèticésunglúcid.
–Proteïnesdelesmembranesicobertescel·lulars.
–Hormones(FSHohormonaestimuladoradelfol·licle,LHohormonaluteïnitzant,TSHohormonaestimuladoradelatiroide).
–Immunoglobulines.
–Mucoproteïnesdelsteixitsconnectiusidelslíquidsarticulars.
–Determinatsenzims(entreelsqualslesribonucleases).
– Lipoproteïnes :elgrupprostèticésunlípid(unglicèrid,elcolesterol,etc.)iexerceixen,entrealtres,funcionsdetransportdegreixos alasang.
– Fosfoproteïnes :elgrupprostèticésl’àcidortofosfòric(caseïna,vitel·lina,etc.).
– Nucleoproteïnes :elgrupprostèticsónelsàcidsnucleics(cromatinadelnuclicel·lular).
– Cromoproteïnes :elgrupprostèticésunpigment.
–Grupprostèticporfirínic:elpigmentderivadelaporfirina(hemoglobina,mioglobina,citocroms,etc.).
–Grupprostèticnoporfirínic:elpigmentnoderivadelaporfirina(hemocianina,pigmentsbiliars,etc.).
Estructuratridimensionaldela mioglobina,unaproteïnaglobular. Elsnombresindiquenelsdiferents aminoàcids.Enelstramsrectes, l’estructuraésbàsicamentenhèlix α, mentrequeenelscolzesesdesorganitza. Sobreimpressionatdamuntlacadena d’aminoàcids(posició40)hihaelgrup hemo,característicdelesproteïnes transportadoresoemmagatzemadores d’oxigen.
Gruphemo,grupprostèticdecertes cromoproteïnes.
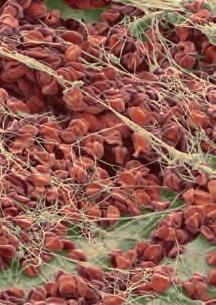
Lesproteïnespresenten especificitat.Adiferènciadelsglúcidsidelslípids,quesónpràcticamentidènticsenlesdiferentsespèciesd’animalsi vegetals,lesproteïnessónaltamentespecífiques: cadaespèciesintetitzalessevesproteïnes,diferentsdelesdelesaltresespècies.Finsitotdins d’unamateixaespèciehisolhaverdiferències individuals.
Lesproteïnes homòlogues sónlesproteïnes quedesenvolupenlamateixafuncióenespècies diferents.Escaracteritzenperpresentarcadenes polipeptídiquesdelongitudiseqüènciasemblants,peròambcanvisenalguns aminoàcidsoriginatspermutaciódelsgensquelescodifiquen.
Exemplesdeproteïneshomòloguesbenestudiadessón:l’hemoglobinadela sangdelsmamífers,encarregadadetransportarl’oxigen;elscitocromsdels mitocondris,queintervenenenlarespiraciócel·lular;lainsulina,queregulaelcontingutenglucosadelasang,etcètera.
L’estudidelesseqüènciesdeproteïneshomòloguesenespèciesdiferents,ha fetpossibleconèixerelfetqueaquestesproteïnespresentenunesposicionscrítiquesonsempreestrobenelsmateixosaminoàcids(anomenatsresidusinvariables),mentrequealarestadelesposicionselsaminoàcidsvariensegons lesdiferentsespècies.S’hacomprovatque,commésproperessónevolutivamentlesespècies,méssemblantssónlessevesproteïneshomòlogues,cosaque hapossibilitatconstruirarbresgenealògicsbasatsenlesdiferènciesienles semblancesentrelesproteïneshomòlogues.
Mamífers
Ocellsirèptils
Arbrefilogenèticdelsvertebratsbasaten lessubstitucionsd’aminoàcidsdela molèculadecitocromc.Lesxifres indiquenelnombred’aminoàcidsenquè cadacitocromcdifereixdelcorresponent alpuntdebifurcaciómésproper.
Peixos cartilaginosos
Elscatalitzadorssónsubstànciesqueaugmentennotablementlavelocitatdelesreaccionsquímiquesperquèendisminueixenl’energia d’activaciónecessària.Elsenzimssónproteïnesquecatalitzenles reaccionsquímiquesquetenenllocenelsorganismesvius,laqual cosapossibilitaqueesdesenvolupinenlescondicionsdelmedibiològic.Entrelescaracterístiquesquecalremarcardel’acciódels enzims,catalitzadorsbiològicso biocatalitzadors ,destaquenles següents:
–Elfetdeserproteïnesqueactuenenquantitatsmoltpetitesique noesconsumeixendurantlasevaacció.
–Launiótemporalalasubstànciasobrelaqualactuen,el substrat,peroriginarun productefinal.Aquestauniótéllocenunaregió concretadel’enzim,el centred’unió o centreactiu . –Elfetquedisminueixenl’energiad’activaciónecessàriaperal’inicidelareacció.
–Lareversibilitatdelasevaacció,queestàcontroladaperlatemperatura,pelpHiperlesconcentracionsdelsubstratidelsproductesfinals.
–Elfetquelasevaacciórequereixsovintlapresènciadesubstànciesnoproteiques,comaraels coenzims,quesón, generalment,molèculesinorgàniques.Tanmateix,si estractad’ionsinorgànicsrebenelnomde cofactors.Engeneral,launiódel’enzimambelcoenziméssuperficialiefímera,peròaltresvegades aquestaunióésmoltestable,perquèl’anomenat coenzimnoésaltracosaquelapartnoproteica d’unaproteïnaconjugada(queésl’enzim).En aquestscasos,s’anomena holoenzim lamolècula completa(l’enzimfuncional),mentreque apoenzim éseltermequedesignalapartproteicadela molècula.
–Laseva especificitat:cadaenzimcatalitzaun soltipusdereaccióigairebésempreactuasobre undeterminatsubstratperbéquen’hihadegraus diferents.
–Lapossibilitatquecertessubstàncies,els inhibidorsenzimàtics ,freninoimpedeixinl’acciódelsenzims;elcianur,elsmetallspesants (plomimercuri)imoltsantibiòticssónalguns exemplesd’inhibidorsenzimàticsd’efectemetabòlicgreu.
Substrat
Mecanisme clau-pany
Centre d’unió
Enzim
Substrat Lareaccióenzimàtica.
Centre d’unió
ComplexES
Enzim
Acoblament induït
ComplexES
L’enzim(E)catalitzalaformaciódel productefinal(P)mitjançantlaunió temporalambelsubstrat(S)performar elcomplexenzim-substrat(ES).
E+S → ES → E+P ←←
Elnomd’unenzimconstadetresparts:prefix,infixisufix. Elprefixfareferènciaalsubstratsobreelqualactua.L’infix descriul’accióespecíficaquehicatalitza,peròs’ometsiaquestaaccióésunahidròlisi.Elsufixéssempreelmateix:-asa Perexemple,la trealasa ésl’enzimquehidrolitzalamolèculadetrealosa,mentrequel’ATP-glucosa-fosfotransferasa és elquecatalitzalatransferènciad’ungrupfosfatdesdel’ATP finsalaglucosa.Sovint,però,aquestsnomscoexisteixenamb nomstrivialsdemésllargatradició.Així,l’ATP-glucosa-fosfotransferasareptambéelnomd’hexoquinasa
Elsenzimsesclassifiquend’acordambeltipusdereaccióque catalitzen.Lessisclassesprincipalssónlessegüents:
• Oxidoreductases:catalitzenlesreaccionsd’oxidació-reducció.
• Transferases:catalitzenlesreaccionsdetransferènciadels grupsfuncionals.
• Hidrolases:catalitzenlesreaccionsd’hidròlisi.
• Liases:catalitzenl’addició,sobreelsenllaçosdobles,dediferentsgrupsfuncionals(alcohol,amino,etc.).
• Isomerases:catalitzenlesreaccionsd’isomerització.
• Ligases i sintetases:catalitzenlaformaciód’enllaços,amb consumd’ATPod’altresvectorsenergètics.
Elsenzimss’anomenenmitjançantnoms compostos,cadascundelsqualsinclou ladenominaciódelsubstratpropi,seguitdelnomdel’accióespecíficade l’enzim(ques’ometsiéslahidròlisi)i delaterminació –asa.Sovintelsenzims tambétenennomscomuns.
7.9. Quès’enténperseqüènciad’unaproteïna?Ambquinaltreterme esconeix?Quinssónelsseusenllaçosresponsables?Comesdeterminalaseqüènciad’unaproteïna?
7.10. Defineixquèéslaconformaciódelesproteïnesiexplicaquins nivellsestructuralsinclou.
7.11. Diguesdequintipusésiperaquèserveixcadaunadelessubstànciessegüents:miosina,immunoglobulina,lipasa,tubulina,hemoglobina,fibrinogen,caseïnaiinsulina.
7.12. Defineixquèésuncol·lageniexplicaaquingrupdeproteïnes pertanyienquinsteixitsiòrgansabunda.
7.13. Escriu,peracadaundelsconceptessegüents,unsubstantiuo unafrasebreuquevulguidirelmateix:catalitzadorbiològic,anticossos,proteïnesconjugades,escleroproteïnes,proteïnessimples,gelatina iproteïnaoligomèrica.
7.14. Defineixelconceptede proteïnaconjugada ide grupprostètic Esmentatresgrupsdemolèculesqueactuïncomagrupprostètici posaexemplesdeproteïnesconjugades.
7.15. Defineixquèésuncatalitzadoriquèésunenzim,idigues comactuen.Explicaquèésl’energiad’activaciód’unareacció. Esmentatrestipusd’enzimsdiferentsenfunciódelareaccióque catalitzen.
7.16. Diguesdamuntdequinssubstratsactuenelsenzimssegüents: lactasa,cel·lulasailipasa.Quinesmolèculess’originenperl’acciócatalíticad’aquestsenzims?
7.17. Contestaalespreguntessegüents:
a)Quinesdiferèncieshihaentrelesproteïnesfibrosesilesglobulars?Posatresexemplesdecadaunad’elles.
b)Quantescaloriess’originenperoxidaciód’ungramdeproteïna?
c)Quinaquantitatdeproteïneshad’incloureunadietaequilibradad’unésserhumàadult?
d)Perquènoseriaadequatferdelagelatinalaprincipalfontde proteïnesd’unadieta?
e)Buscalatauladecomposiciódequatrealimentsd’origenanimalquesiguinricsenproteïnesiladequatrealimentsd’origen vegetal,tambéricsenproteïnes.Indicaelcontingutenproteïnes, per100grams,decadaundelsalimentsanteriors.
7.18. L’aspartam,quecomhemvistésunedulcorantmoltintens,ésundipèptidformatperàcid aspàrticifenilalanina.Quinespodrienserlesdues fórmulesestructuralsd’aquestasubstància?Formula-les.Assenya-lasobrelesmolèculesalgunsdels grupsfuncionalsresponsablesdelsabordolç.
7.19. Enquèconsisteixlatècnicadel’electroforesi? Explicaperaquès’utilitzaienquèesbasa.Totraonantlesrespostes,diguestambésielssegüentsfactors podeninfluirenlamigraciód’aminoàcidsiproteïnes: a)diferènciadepotencial; b)intensitatdelcorrent; c)porositatdelgel; d)duradadelaprova; e)temperatura; f)il·luminació.
7.20. Calculaelteumínimproteicdiariidesprésla proporciómínimarecomanabledeproteïnesd’origenanimalqueesnecessitadiàriament.Apartirde lesdadesdelaprimeratauladelapàgina213,calculalesquantitatsd’alimentsnecessàriesperassolir elsmínimsproteicsquehascalculatabans,pera tresdietesdiàriesdiferents:a)ambcarn;b)sense carnperòambpeix;c)estrictamentvegetariana peròambcontingutsproteicssuficientspercomplementació.
7.21. EscriulesfórmulesLiDdel’aminoàcidserina.
7.22. Ambbolesdepoliestirèexpanditblancdediferentsmidesitrossosdefilferro,construeixunmodel tridimensionaldel’aminoàcidglicina.
7.23 Quingrupfuncionaléselcausantdelcaràcter bàsicdelsaminoàcids?
7.24. Digueselnomdelsaminoàcidsquetenenels radicalssegüentsiescriu-nelafórmulacompleta: CH3–;H–;HO–CH2–.
7.25. Enlail·lustraciód’aquestapàginaesrepresenta laseqüènciadelaproteïnabacteriorodopsina.Cada lletracorresponalsímbold’unaminoàcid.Esmenta elsnomsdelscincprimersaminoàcids.Escriula seqüènciadelsdotzeprimersaminoàcidsfent-neservirlesabreviatures.
7.26. Consultaundiccionarietimològiciexplical’etimologiadelstermesproteïnesipròtid.
7.27. Diguesaquintipusdemonòmerscorresponen aquestesfórmulesempíriques:H;NH2;R–C–COOH.
7.28. Ladesnaturalitzaciód’unaproteïna,comafectalasevaestructuraprimàriaoseqüència?
7.29. Sienungotdellethiaboquemunesquantes gotesd’àcidclorhídric,esprodueixunareaccióben visible.Coms’anomenaelprocésquetéllocalallet iquinsdelsseuscomponentsafecta?Siesfiltralallet ambpaperdefiltreiseseparaelmaterialcoagulat, quècalferpercomprovarquehihaproteïnes?Esbrinaquinesproteïnesabundenalallet.
7.30. Explicaquèpassaquanesbulloesfregeixun ou.Esmentaquinessónlesproteïnesmésabundants enlaclaraienelrovelld’ou.
7.31. Quèpassaquanafegimàcidnítricconcentrat aunasoluciódeproteïna?Quèensindicaaquesta reacció?
Quèpassaquanesfalaprovaxantoproteicaauna soluciódel’aminoàcidglicina?Perquè?
7.32. ¿Lesproteïnes,desenvolupenfuncionsenergètiquesenelsorganismes?Raonalaresposta.
7.33. Esmentadosalimentsd’origenanimalquetinguinelmàximvalornutritiu.Quinessónlesnecessitats diàriesdeproteïnesd’unapersonad’entre13i18anys?
7.34. Quinéselvalorbiològicdelagelatina?Aquè ésdegut?
7.35. Enunàpat,unapersonaesprenunparell d’ousferrats.Fentlesconsultesquecalguin,contesta alespreguntessegüents:
a)Quinesproteïnesingereix?
b)Onesprodueixladigestiód’aquestesproteïnes?Quinsenzimshiintervenen?
c)Quinesmolèculess’originenenladigestióde lesproteïnes?
d)Quinafunciódesenvolupenaquestesmolèculesienquèesfanservir?
7.36. Quèsónlesproteïneshomòlogues?Explicales sevesaplicacionsenelsestudisdegenètica.
7.37. L’hemoglobinailamioglobinasónduesproteïnesmoltimportantsenelsvertebrats.Onestroben? Ambquinesfuncionsestanrelacionades?Comesdiu elgrupprostèticquelesforma?Quincatióforma partd’aquestgrupprostètic?
7.38. Identificaelsesquemesdelail·lustraciódesota, querepresentenl’estructuradelesproteïnes,iordena’ls.Quès’enténperconformaciódelesproteïnes? Quinsenllaçosquímicsformenl’estructuraprimària delesproteïnes?
7.39. L’arròsambmongetesésundelsplatsméspopularsdelescuinesiberoamericanes.Aquestplatésmolt nutritiu,totiqueelvalorbiològicdelesproteïnesde l’arròsnomésésdel50%ieldelesmongetes,del 40 %.Aquèesdeu,doncs,elseualtvalornutricional? Sovintaaquestplats’afegeixunamicadecarnpicada. Aquestfetmilloraoempitjoraelvalorbiològicdelconjunt?Perquè?Reescriulesrespostesanteriorsexplicantlesentermesdecontingutsenaminoàcidsconcrets.
7.40. Quèéslaproteònica?Quinssónelsobjectiusi lestècniquesd’estudid’aquestabrancadelabiologia molecular?
1. Enumeracincprocessoscel·lularsenquèestrobin implicadeslesproteïnes.Comesmanifestenenles proteïneslesmutacionsoelscanvisenl’ADNdel nuclicel·lular?Quèsignificaquelesproteïnessón biomolèculesespecífiques?
2. Enlescèl·luleseucariotes,lasíntesidelesproteïnesésunprocésmoltcomplex.
a)Aquinstipusd’orgànulscitoplasmàticsesprodueixaquestasíntesi?
b)Quinesmacromolèculesdelgrupdelsàcids nucleicssónnecessàriesperalasíntesidelesproteïnes?Explicalafunciódecadaunad’elles.
c)Quinsmonòmerssónimprescindiblespersintetitzarlesproteïnes?
3. Quanlesproteïness’hidrolitzen,s’obtenen,coma molèculesresultants,aminoàcids.Responalespreguntessegüents,quefanreferènciaaaquestessubstàncies:
a)Quèés,químicament,unaminoàcid?
b)Quèsignificaquelesmolèculesdelsaminoàcidssónamfòteres?
c)Quantsaminoàcidsdiferentshihaenlesproteïnes?
d)ElsaminoàcidsespodenrepresentarperlafórmulageneralR–C–…,enlaqualfaltenalgunscomponents:
–Quinsgrupss’enllacenalC α ?
–QuèesrepresentamitjançantlalletraR?
–EscriulafórmuladeRenelsaminoàcids següents:serina,cisteïna,valinaileucina.
4. Escriuuntripèptidfentservirelsaminoàcidsglicina,cisteïnaivalina.
5. Enlail·lustraciódesotaesrepresentalaseqüència delamolèculadelaproteïnaribonucleasa,unenzim quetrencaohidrolitzalesmolèculesd’ARN.Observaatentamentaquestail·lustracióicontestaalespreguntessegüents:
a)Quantsaminoàcidssónelsquecomponen aquestaproteïna?
b)Escriuelnomielsímboldelsaminoàcidsque ocupenelsllocs1,7,22,66i124.
c)Quantsresidusdelisinaidevalinahihacompresosenaquestaproteïna?
d)Tenintencomptequelesratllesdecolortaronjarepresentenunsenllaçosespecials,nopeptídics, anomenatspontsdisulfur,diguesquantsd’aquests enllaçoscontélaribonucleasaientrequinesparelles d’aminoàcidss’estableixen.
6. Consultaelsgràficsdelespàgines213i214ifes unahipòtesisobreenquinspaïsossónmésfreqüents lessegüentsmalaltiesoelssegüentsdèficitsnutricionals:
a)arteriosclerosi;b)dèficitproteic;c)excésde pes;d)excésdetriglicèridsalasang.
Estufadecultiu.
a) Úsd’utillatgeitècniquesbàsiquesdelaboratori(cont.).
b) Preparaciódedissolucionsireactius(cont.).
c) Identificaciódeproteïnesiaminoàcidspermitjàdeprocessosireaccionsquímiquesespecífiques.
d) Estudid’algunespropietatsfisicoquímiquesdelesproteïnes.
e) Introduccióal’aplicaciópràcticadelestècniquesbioquímiquesde laboratoriperal’anàlisidelaqualitatalimentària.
f) Dissenyd’experiments,comprovaciód’hipòtesis,recollidadedadesi confecciód’informes.
Observació:calextremarlesmesuresdeprecaucióenmanipularlesbasesielsàcids ques’indiquenperalarealitzaciód’algunesdelesexperiències.
Genèric
Morter,càpsuladeporcellanaosimilar,verddemalaquita,formaldehid, pipetes,comptagotes,embut,paperdefiltreplegat,quaderndenotes, tubsd’assaigigradetes,pincesdelaboratori,cremadors,suportsotrespeus,reixetaprotectora,xicresdelaboratori,estufadecultiu,ous,llet, purédepatata,terrinademenjarpreparatperanadons,pernildolç, mostresdiversesdecarnfresca(salsitxes…),salsitxesdefrankurt,mostresdiversesd’embotit(xoriço,mortadel·la…),mostresdemarisc (gamba,llagostí,cranc…),llexiu,cristal·litzadors,escalfadorperalbany maria,sal(NaCl),mantega,margarina,recipientperacromatografia, assecador,cubetes,gibrellsoaltresrecipientsgrans,flascóoampollade vidrefosc,espàtules,erlenmeyerde250,filtresdepaper,embutdevidre, aiguadestil·lada.
Albúmina,clarad’ou,glicocola,tirosina,tripsina,midó,lugol,formaldehid,ninhidrina,hidròxidsòdical40%,sulfatdecoureal’1%,àcid clorhídric,àcidnítricconcentrat,àcidsulfanílic(oreactiudeGriessA), a-naftilamina(oreactiudeGriessB),papercromatogràficWhatman núm.1oplaquesdecromatografiaMerck,n-butanol,àcidacèticglacial,bicarbonatsòdic(ounaltrealcalinitzador),timol(ounaltrebactericida),paperdecúrcuma.
a)Identificaciódeproteïnes:laprovadelbiuret
Siesmesclenelsenllaçospeptídicsambunesgotesdesulfatdecouredelesproteïnes(–CO–NH–)encalentienunmedifrancament bàsic(perexemple,enpresènciad’hidròxidsòdicconcentrat)elresultatésuncaracterísticcolorvioleta-rosaciqueésdegutal biuret
Aquesttestesdenomina provadelbiuret perquèquanlaureaprocedentdelesproteïness’escalfapersobredelseupuntdefusió,es descomponenamoníaciàcidciànic(CNOH)elqual,juntamentamb unasegonamolèculad’urea,formabiuret(NH2.CO.NH.CO.NH2) quereaccionaenpresènciadel’iócúpricidónaelcolorvioleta-rosacicaracterístic.
Laprovadebiuretserveixperidentificarlapresènciad’enllaçospeptídics,pertantserveixperdetectarproteïnesopèptids.Encanvi,els aminoàcidslliuresdonennegatiuaaquestaprova.
Preparaunabateriade5tubsd’assaigiomple’lsamb3cm 3 dedissolucions:elprimertubambunadissoluciód’albúmina,elsegonamb glicina(oglicocola),eltercerambmidó,elquart(tubcontrol)amb aiguapuraielcinquè(tubproblema)ambuncontingutdelateva elecció(cal,però,quesiguiunamesclahomogèniaiqueelseucolor nopuguiemmascararelresultatdelaprova).Afegeixacadatub 2cm 3 d’hidròxidsòdicconcentrat(al20%),primer,i,desprès,de sulfatcúprical’1%,gotaagota.Ambl’ajutdelapinçaescalfasuaumentelstubs.Observa,anotaelsresultatsiinterpreta’ls.Després, copialataulasegüenticompleta’nlesdades.Redactauninformei explicaquèhasdetectat;quinessubstànciesdonenpositiuenaquestaprovaiquines,no.
Provadelbiuret:eltubdel’esquerraha donatpositiuieldeladreta,negatiu.
Resultat
Interpretació
Sis’afegeixàcidnítricaunasoluciódeproteïnesesformasovintun compostaromàticnitratdecolorgroc.Aquestaésprecisamentlaraó delnomd’aquestaprova,jaquelaparaulagrega xanthos significa‘gro-
c’.Enrealitat,laprovanomésdónapositiuquanenelmedihiha aminoàcidsambradicalsaromàtics(comelsanellsbenzènicsdeltriptòfano,especialment,delatirosina).
Pertant,mentrelaprovadelbiuretésparticularmentútilperidentificarproteïnes,laprovaxantoproteicaserveixperidentificarelsaminoàcidsaromàtics.
Preparaunabateriade5tubsd’assaigiomple’lsamb3cm3 dedissolucions:elprimertubambunadissoluciód’albúmina,elsegonamb glicina(oglicocola),eltercerambtirosina,elquart(tubcontrol)amb aiguapuraielcinquè(tubproblema)ambuncontingutdelateva elecció(cal,però,quesiguiunamesclahomogèniaiqueelseucolor nopuguiemmascararelresultatdelaprova).
Ambmoltdecompte,iambl’ajutdelprofessorolaprofessora,afegeixacadatub1cm3 deHNO3.Escalfa’lsalbanymariafinsa100°C, desprésrefreda’lsambaiguafredaiafegeix-hiNaOHal40%,gotaa gota.Observa,anotaelsresultatsiinterpreta’ls.Després,copialatauladesotaicompleta’nlesdades.Redactauninformeque,entrealtres, contestialespreguntessegüents:
a)Hihaalgunasubstànciaquehagidonatpositiualaprovadel biuretinegatiualaxantoproteica?Perquè?
b)Hihaalgunasubstànciaque,alcontrari,hagidonatpositiuala provaxantoproteicainegatiualadelbiuret?Perquè?
c)Quinaprovapermetidentificaraminoàcids?Permetidentificarlostots?
d)Quinaprovapermetidentificarproteïnes?
e)Quinaprovapermetidentificarpèptids?
c)Ladesnaturalitzaciódelesproteïnes
Unadelescaracterístiquesméssobresortintsdelesproteïneséslalabilitatdelasevaestructuratridimensional.Canvisenlescondicionsfisicoquímiquesdel’entornlesdesnaturalitzen.Comestudiaremmésendavant,aquestscanvisesmanifestentambéenmoltsdelsprocessosde cocciódelsalimentsquecontenenproteïnes.
Analítica
Preparaunabateriade5 × 3tubsd’assaigambuns3cm3 dedissolucionsdeproteïnes:albúmina,clarad’ouillet.Afegeixalprimertub decadasèrie1cm3 d’àcidclorhídric;alsegon,1cm3 deNaOH;al tercernohiafegeixisres,nomésescalfa’lambl’ajutdelespinces;iel quarttubdeixa’lcomacontrol.Pelquefaalcinquètub,pensaquin altrecanvisusceptiblededesnaturalitzarlesproteïnespodriesexperimentar-hi.
Observa,anotaelsresultatsiinterpreta’ls.Després,copialataulade sotaicompleta’nlesdades.Redactauninforme.
Lliureelecció HCl
Lacromatografiaésunmètoded’anàlisi–ésadir,deseparació–consistentaferpassarperpercolacióunamesclaproblema,enfaselíquidaogasosa,atravésd’unafaseestacionàriaquepotserunsòlidoun líquidqueimpregnaunsuportinert.Enelprocés,elscomponentsde lamesclaseseparend’acordamblasevadiferentvelocitatdemigraciótotalllargdelafaseestacionària(velocitatquevariaenfunciódel tempsi,enparticular,delesdimensionsicàrreguesdelsdiferentscomponents).
Analítica
Talcoms’indicaenl’apartatdematerial,peralacromatografiapròpiamentditatantpodemferservirpaperWhatmancomplaquesMerck.
Prèviament,hauremd’haverpreparatunhidrolitzatdeproteïnaque continguiunabonavarietatd’aminoàcids.Defet,podríemprepararnediversosiobservar-neladiferentcomposició.
Perexemplepodemposar5gdeclarad’ou,0,5gdel’enzimtripsinai5cm3 d’aiguaenunpetitrecipienttapatquedisposaremal’estufadecultiu(auns25°C)durant48h.Perimpedirquelacontaminacióbacterianaespatllilamescla,caladdicionarunagentalcalinitzador(bicarbonatsòdic,perexemple)iunbactericida(timol,per exemple).
Al’interiord’unrecipientdecromatografiadevidresalts(d’entre 25i30cm)iquetanquinhermèticamentdisposaremunparelldedits dedissolvent(lafaseestacionària)compostapartsigualsd’àcidacèticglacial,n-butanoliaiguadestil·lada.
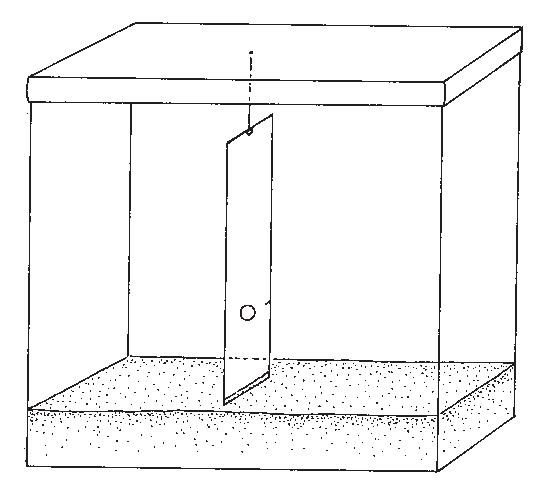
Disposaremelpaperoplacadecromatografia penjatdelacobertadelrecipient,demaneraque mulliunamicaellíquiddelfons.Ambunllapis marcaremunalíniahoritzontala4o5cmdela superfíciedellíquidisobreaquestalíniadipositaremcincosisgotesdelesmesclesproblema, sensequeestoquinsientenimmésd’una.Cal quenos’estenguinapenes.Perevitar-hoposarem lesgotesunaaunaicadacopl’eixugaremamb moltasuavitatambl’assecadordemà.
Deixaremreposarelrecipientde8a16hores, bentancatperevitarl’evaporació.Ambelllapis marcaremunalíniaallíonhaarribatelfrontdel líquidihodeixaremeixugar(sical,ambl’assecadordemàpodemaccelerarsuaumentelprocés).
Elprocéséspràcticamentacabat,perònoesveu resencara.Elsdiferentsaminoàcidsestanenalgun puntentrelalíniad’origenilalíniad’arribada:calrevelarelspapers olesplaques,comsifossinnegatiusfotogràfics.Peraixò,agafemla tiraoplacadecromatografiailabanyemenunacubetaambninhidrina,quetenyeixdeblauelsaminoàcids.Uncopreveladeslestaques delsaminoàcidsretiremieixuguemambl’assecador.
Ninhidrina 2-hidratd’1,2,3-indantriona
Enpresènciad’aminoàcids,laninhidrinaestransformaenlasubstànciapigmentadadeladreta.
Elsaminoàcidsespodenarribaraidentificarpelsseuscoeficientsde migració(ca):
c a =desplaçamentdel’aminoàcid/desplaçamentdelfrontdeldissolvent.
Peralsaminoàcidsdel’albúminadel’ou,elscoeficientssónels següents:
Àcidaspàrtic
Àcidglutàmic
Alanina
Arginina
Fenilalanina
Glicina
Isoleucina
Leucina
Redactauninformesobreelprocésdelacromatografiai,mitjançantesquemesidibuixos,indicaquèhasfetiperquès’hanseparat lessubstànciesanalitzades.Miradecontestarpreguntescomaraquè passariasicanviéssimelsuportosivariéssimlafaseestacionàriaola duradadelaprova.
La bromatologia ociènciadelsalimentss’ocupa,entrealtrescoses,de l’aplicaciódetècniquesquímiquesperalaidentificaciódelsnutrients ialtressubstànciescontingudesenelsaliments.
Algunesd’aquestessubstàncies,comaraelsconservants,hisónafegidespermillorarlaconservaciódelsaliments,sónperfectamentsaludablesinopresentencaprisc.Nosempre,però,espodenferservir peratotamenad’aliments.Hihauneslleisalimentàriesqueenregulenl’ús.
Hihatambéelfrau,ésclar,comperexempleafegirmaterialsbarats enalimentsdeméspreu.Perexemple,elmidó.Noéspasquesigui dolent,peròésunaadulteració.
Devegades,mesurarlaqualitatdelsalimentséscomplicat,perquè exigeixprovesdelabotatoricomplexes.Altresvegades,però,n’hiha prouambunesoperacionssenzillesperconèixerlaqualitatd’allòque consumim.
e)Lescarnstenenmidó?
Ésclarqueno.Elmidóésunpolisacàriddereservadelesplantes.
Quanelsanimalsenmengen,l’hidrolitzenaglucosai,sielsensobra, aquestaglucosal’emmagatzemenenformadeglicogen,nopasdemidó.
Lapresènciademidós’identificamoltfàcilmentambellugol.Aquestatècnicapotservirperdetectar-loenelmenjar.Provaremsialguns producteshabituals(purédepatata,pernildolç,salsitxesdeFrankfurt, embotits…)encontenen.
Elsalimentscàrnicsnocontenenmidó. Laprovadellugolpermetdetectar-ne adulteracionsambaquestasubstància d’origenvegetal.
(color)
(color)
Interpretació
Elpernildolçéssovintundelsalimentsamb elsqualsescometenmésfraus.Desdel’addiciód’aiguaperaugmentar-neelpes(només calveurecomquedaelpaperenquèhaestat embolicatalgunpernildolçocomquedael mateixpernildeixatal’airesenseembolicar) finsal’addiciódemidó.
Agafaunamostradecadaundelsaliments següents:purédepatata,duesmarquesdiferentsdepernildolç,duesmarquesdiferents desalsitxadeFrankfurt,xoriçoimortadel·la. Aixafaambelmortercadamostraidissol-la enaiguadestil·lada.Aboca’nnoméslapart líquidaentubsd’assaig.Sicreusqueelcolor d’algund’aquestssucspodriaemmascararel resultatdelamostra,neutralitza’lambuna gotadellexiu.
Addiciona-hiunesgotesdelugol.Percomprovarelresultatdeles proves,tiradirectamentunparelldegotesdemidósobremostresdels alimentsanalitzats.
Observacióiinterpretaciódelsresultats
Observa,anotaelsresultatsiinterpreta’ls.Després,copialataulade sotaicompleta’nlesdades.Redactauninformeque,entrealtres,expliquilesqüestionssegüents:
a)Ésraonablequeelpurédepatatadonipositiualaprovadel lugol?Perquè?
b)Sialgundelsalimentscàrnicscontémidó,quèsignifica?
c)Dissenyaunexperimentqueetpermetiesbrinarlaquantitatd’aiguacontingudaenelpernil. Interpretació
f)Ilamantegaolamargarina?
Preparaensenglestubsd’assaigduesmostresfoses,escalfant-leslleugerament,demantegaidemargarina.Addiciona-hiunesgotesdelugol. Anotaelresultat,comenta’liexplica’nlesdiferències.
Elmetabisulfitdepotassiésunadditiuconservador(E-224)iantioxidantpermèsencrustacis,vinsialtrestipusd’aliments.Tambés’usa perrealçarelcolorencarnscrues,comaralessalsitxes,peròestàprohibitutilitzar-loperalescarnscuitesoadobadesperquènoajudapas alasevaconservaciói,comquerealçaelcolor,potemmascararputrefaccions.
Analítica
Ensolucióaquosa,elS2O52– estransformaenSO3H–,segonslareacciósegüent:
S2O52– +H2O → 2SO3H–
Pertant,potdetectar-seenformadebisulfits,jaqueaqueststenen capacitatperdecolorarelverddemalaquita.
Preparaciódelreactiu.Preparaunadissoluciódeverddemalaquita al0,02%enaiguadestil·lada.Pren4o5gdemostresdecarnde diferentstipus.Tritura-lesperseparatenunmortericol·loca-lesales càpsules.Afegeix8gotesdeverddemalaquitaacadamostraiagitalesambunaespàtula.
Enpresènciademetabisulfitelcolorverddelreactiudesapareix. Aquestresultatespotconfirmarambformaldehid,jaquesis’afegeixen15gotesd’aquestasubstànciaalesmostresreapareixelcolorverd.
Observacióiinterpretaciódelsresultats
Copialatauladesotaicompleta’nlesdades.Interpretaelsresultats quehasobtingutiredactauninforme.
Perarealçarelcolordelescarnscrues avegadess’usenadditiusconservadors iantioxidants.
Interpretació Resultat (color)
Elcefalotòraxdelesgambess’ennegreix quandeixendesermoltfresques.
Elsnitritsdepotassiidesodi(E-249,E-250)s’usencomaconservadorsenlescarnspreparades,especialmentenelsembotits.Tanmateix, elseuúsnopotexcedirels125mgperkgiestàprohibitdeposarneenelsalimentsperanensdemenysde6mesos.
Aquestessubstànciesesreconeixenperlacoloraciórosaorogencaque donenambelsreactiusdeGriess.
Preparaciódelsreactius.SinodisposesdelsreactiusdeGriess,els potsprepararseguintaquestespautes:
–ReactiudeGriessA:1gd’àcidsulfanílicen30mld’àcidacètici 70mld’aiguadestil·lada.
–ReactiudeGriessB:0,3gd’α -naftilaminaen30mld’àcidacètic i70mld’aiguadestil·lada.Aquestreactiucalguardar-loenunaampolladevidrefosc.
Preparaciódelesmostres.Preparaalgunesmostresd’embotitid’algunalimentpreparatperainfants.Esmicola,perseparat,uns8gde cadaproducteitritura’lsfinamentenunmorter.Abocalespastesobtingudesencàpsulesdeporcellana,afegeix-hi20mld’aiguadestil·ladai remena-lesambunaespàtula.Filtraelcontingutdelacàpsulaambun paperdefiltreplisatsobreunembutirecull-loenunaaltracàpsula.
Afegeixaraacadamostraduesgotesd’àcidacèticglacial,quatre gotesdereactiudeGriessAiquatregotesdereactiudeGriessB.Si hihanitritsapareixeràlacoloraciódescrita.
Observacióiinterpretaciódelsresultats
Copialatauladesotaicompleta’nlesdades.Interpretaelsresultats quehasobtingutiredactauninforme.
Resultat (color)
Interpretació
Durantmoltdetemps,l’àcidbòric(H3BO3)s’utilitzàpermillorar l’aspectedelpeixidelmarisc,jaqueelcapdelesgambesodelsllagostins,perexemple,estornaràpidamentnegresielproductenoés moltfresc.Encanvi,l’addiciód’àcidbòricelmantéd’unboniccolor
vermell.Tanmateix,l’àcidbòricfaanysqueestàprohibitperquèes tractad’unproductetòxic.
Analítica
Elsreactiusempratsenaquestaprovasónmoltsensibles.Cal,pertant, quetotselsestrisausarestiguinbennetsiaclaritsambaiguadestil·lada.
Submergeixlesdiferentsmostresdemariscaanalitzarenunrecipientambaigua(platsoper,cristal·lizador…)durantuns10minuts. Desprésposauns5cm3 delsucobtingutensenglestubsd’assaigi escalfa’ls,suaument,finsa50°C.
Mullaunatiretadepaperindicadordecúrcumaacadatub.Una coloracióvermellaintensadenotapresènciad’àcidbòric.
Elpaperindicadordecúrcumaestàimpregnatdelprincipiactiu curcumina(C21H20O6),decolorgroctaronjaiprocedentdel’arrel delaplantadelacúrcuma.EnpresènciadeH3BO3,lacurcuminas’isomeritzaarosocianinaque,enmediàcid(perexempleunagotade HCl),téuncolorvermelldesang.
Éspossible,encara,unacontraprova:enmedibàsiclacoloracióvira ablauverdós.Deixaassecarlatirai,uncopseca,mulla-laambunes gotesdeNaOH.Elbòrics’identificaaraperuncolorblauverdós.
Observacióiinterpretaciódelsresultats
Copialatauladesotaicompleta’nlesdades.Interpretaelsresultats
Resultat enmediàcid (color)
Resultat enmedibàsic (color)
Interpretació
quehasobtingutiredactauninforme.
j)Estudidel’ou
Enaquestasessiódelaboratorihasestudiatalgunsaspectespràctics delacomposiciódel’ou.Araéselmomentd’estudiarl’oucoma
Ensalmorra,unoufrescadoptauna posicióhoritzontal.Commésvellés,més verticalqueda.
aliment.
Mesurarlaqualitatdelsalimentsnosempreéscomplicat.Enelcas delsous,perexemple,n’hihaprouambsenzillesoperacionsperconèixerlaqualitatd’allòqueconsumim.Ungrupd’alumness’encarregaràderecollirousdediversafrescor,quenomésellsconeixeranper mitjàdemarquesosenyalsespecífics.
Pertaldecomprendreelsprocessosques’esdevenenenunouamesuraqueenvelleixcalconèixerquinespartsté.Prenunou,obre’lsobre unplatimirad’identificar-hi toteslespartsquehihaindicadeseneldibuix.Fesun dibuixsemblant,assenyala-hi allòquehasvistidiguessil’ou quehasestudiateramoltfresc ono.
Observació del’ouamb l’ovoscopi
Compodemsabersiun ouésfresc?
Elmètodemésfiableéselde l’ovoscopi.Estractad’unsenzillaparellquepermetmirar l’ouabesllumiestudiaraixí laposicióielvolumdela cambradegas.
Oudetres setmanes
Oude4-6dies
Oudemésde tressetmanes
Aspectede l’oucru
Aspectede l’ouferrat
Aspectede l’oudur
Perl’aspecte.Uncoptrencatiposatalplat,elrovelldel’oufrescté pocdiàmetreiforçaalçada.Laclaraquedabastantconcentradaal seuvoltant.Sitémoltsdies,la claras’escampamésielrovellse situaenposicióexcèntrica.
L’aiguaquemillorindicalaqualitat d’unouéslaqueconté40gdesal perlitre.Unoufrescs’hienfonsai hiquedatombat,ambl’eixmajor horitzontal.Amesuraquel’ouesfa vell,tendeixasurarielseueix majors’aixeca.Enunaaiguaamb 40gdesalperlitre,unoude quatreasisdieshiquedaenfonsat, peròambunainclinaciódelseueix majord’uns20°;unoude8o10 diespresentaunainclinacióde45° iunoude3setmanestéelseueix majorgairebévertical.Elsousmés vellss’aixequendeltotisuren.No obstantaixò,avuidias’utilitzen moltsprocedimentsperallargarla vidadelsous:refrigeració,pintato envernissatambsubstàncies segelladoresiantimicrobianes…
Perladensitat.Lacloscadel’ou ésporosaipermetqueelvapord’aiguaquehihaalacambrad’aire del’ousurtiiquehientriaire.Això provocaelcreixementd’aquesta cambrad’airei,pertant,ladensitatd’unouésinversamentproporcionalalasevafrescor.Ésper aquestmotiuqueunoufrescs’enfonsaenaiguapuraisuraenaigua ambforçasal.
Analítica
Agafemousdediversesprocedències–prèviamentidentificatsamb unsenyalpersaber-neelgraudefrescor–idosrecipients,unamb aiguapurail’altreambaiguasaturadadesal.Primerposemelsous enelrecipientambaiguapuraiobservemquetotss’enfonsen.Desprésposemelsousenunrecipientmigpled’aiguasaturadaiobservemquetotssuren.Acontinuació,hiafegimaiguapurademica enmicaiobservemeldistintcomportamentdelsous.
Observacióiinterpretaciódelsresultats
Redactauninformeperexplicarquèhasfeticoméspossibleestudiard’aquestamaneralaqualitatdel’ou.Procuraquel’informeresponguiapreguntescomaraquinssónelsousquesurenabansiper què;quinssónelsousquetenenunacambrad’airemésgran;etc.
Estudiexperimentaldelesproteïnesdel’ou
L’oucontéabundantsproteïnes.Dissenya,niquesiguiteòricament, unexperimentperavaluar-neelprocésdecoagulaciódurantlacoccióicomprova’nalacuinadecasaelsaspectesmésempírics.Escriu uninformequecontestiaaquestesqüestions:
a)Quèpassaambelrovellilaclaraquanfemunouferrat?
b)Quèpassaambelrovellilaclaraquanfemunoudur?
c)Perquèquallaprimerlaclaraqueelrovell?
d)Quinarelaciótenenamblafrescordel’oulessituacionssegüents enunoudur: –laposiciódelrovell; –elfetquesiguifàcilonodepelar; –elcolordelasuperfíciedelrovell.
e)Perquèquanfemunouferrat,lapartdelaclaraquetocael rovelléslaquetardamésaquallar?
f)Siposemunpessicdesalenaquellapart,quallaabans?Perquè?
g)Quinaaltrasubstànciad’efectessimilarshipodríemposar?
1.Els àcids nucleics
2.Nucleòsids i nucleòtids
3.L’ADN o àcid desoxiribonucleic
4.L’ARN o àcid ribonucleic
Model d’ordinador de l’estructura de les molècules d’ADN.
Per perpetuar-se, un organisme ha de ser capaç de reproduir-se. Per fer-ho, ha de posseir, i traspassar, una descripció completa d’ell mateix. Aquesta descripció és la informació genètica: un «conjunt d’instruccions» que detallen cada pas per construir una cèl·lula idèntica. En les cèl·lules, aquesta informació genètica necessària es troba en l’ADN o àcid desoxiribonucleic. Però la informació només és útil si es pot expressar. En les cèl·lules, la informació continguda en l’ADN es copia en una molècula emparentada, l’ARN o àcid ribonucleic, mitjançant un procés anomenat transcripció. A continuació, en un procés de traducció, aquesta informació així transcrita es tradueix en forma de proteïna.
L’estructura de l’ADN té dues cadenes helicoïdals, enrotllades al voltant del mateix eix. (...) Cada cadena consta de grups fosfodièster que s’uneixen amb residus de b-D-desoxiribosa. (...) Les bases són a l’interior de l’hèlix. (...) Donada la seqüència de bases d’una cadena, queda automàticament determinada la seqüència de l’altra cadena.
J. WATSONI F. CRICK, L’estructura molecular dels àcids nucleics (1953)
Els àcids nucleics, l’ADN i l’ARN, són principis immediats que tenen caràcter àcid. L’any 1869, el metge suís Friedrich Miescher, que treballava a la Universitat de Tübingen, els va descobrir estudiant els leucòcits del pus. No obstant això, conèixer-ne la composició i l’estructura molecular va costar molt. En la dècada de 1930, Walter Kossel i Philip Levine van estudiar-ne l’estructura covalent, i van descobrir que estaven formats per la unió de nucleòtids. L’any 1953, James Watson i Francis Crick van descobrir l’estructura tridimensional, en doble hèlix, de l’ADN. Es van basar en els estudis de difracció de raigs X de fibres d’ADN fets per Rosalind Franklin i Maurice Wilkins, i en l’anàlisi d’una diversitat d’altres dades, com ara la composició de bases, estudiada per Erwin Chargaff, durant la dècada de 1940.
L’any 1962, Watson, Crick i Wilkins (Franklin havia mort de càncer) van rebre el premi Nobel pel descobriment de l’estructura de l’ADN, un fet que es va revelar cabdal per al desenvolupament de la ciència de la segona meitat del segle XX, i a partir del qual es produí una allau de descobriments en el domini de la genètica i de la biologia moleculars.
(compost originari de les bases púriques)
(compost originari de les bases pirimidíniques)
Les bases nitrogenades.
-D-ribosa
Els àcids nucleics contenen carboni (C), hidrogen (H), oxigen (O), nitrogen (N) i fòsfor (P); aquest últim en una proporció constant, del 10%, a diferència de quan forma part de les proteïnes. Químicament, es defineixen com a llargues cadenes lineals no ramificades, constituïdes per la polimerització d’unes subunitats, dites nucleòtids.
La peça elemental que es repeteix en un àcid nucleic és el nucleòtid, el qual, al seu torn, està constituït per l’acoblament de tres molècules, una pentosa, una base nitrogenada heterocíclica i una molècula d’àcid fosfòric (ortofosfòric).
La pentosa que forma part dels nucleòtids dels àcids nucleics és la Dribosa, una aldopentosa, o bé un derivat seu, la 2-desoxi-D-ribosa. Els àcids ribonucleics (ARN) estan constituïts per nucleòtids de ribosa, mentre que l’ADN conté només nucleòtids de desoxiribosa.
D’altra banda, la substància rica en nitrogen i amb propietats alcalines, o «base nitrogenada heterocíclica», és una base púrica o pirimidínica, és a dir, derivada de la purina o de la pirimidina. Són bases púriques l’adenina i la guanina (de símbol A i G, respectivament) i són bases pirimidíniques la timina, la citosina i l’uracil (T, C i U, respectivament). La timina només es troba a l’ADN; l’uracil, a l’ARN. La resta de bases són comunes en ambdós àcids nucleics; de fet, l’uracil substitueix la timina quan, durant el procés de transcripció, es copia la seqüència de l’ADN en l’ARN.
En l’ADN i en l’ARN hi ha també petites quantitats de derivats metilats de les quatre bases nitrogenades principals, que s’anomenen bases minoritàries, amb funcions específiques de protecció o programació de l’àcid mateix.
La unió de la ribosa o la desoxiribosa amb la base nitrogenada té lloc per mitjà d’un enllaç anomenat N-glucosídic entre el C-1’, o carboni 1, de la pentosa i el nitrogen1 (si és una base pirimidínica) o el nitrogen 9 (si és una base púrica) de la base nitrogenada. La molècula constituïda per la unió de la pentosa amb la base nitrogenada s’anomena nucleòsid. Quan el nucleòsid s’uneix amb l’àcid ortofosfòric a través d’una reacció d’esterificació sobre el grup –OH del carboni 5 de la pentosa, es forma un nucleòtid.
2.2. La denominació
Quan el sucre que hi ha en els nucleòsids és la ribosa, aquests es designen amb la terminació -idina (si les bases són pirimidíniques) o amb la terminació -osina (si les bases són púriques). Ara bé, quan el sucre que hi ha és la desoxiribosa, a més de les terminacions anteriors, s’anteposa el prefix desoxi- al nom de la base nitrogenada. Així, per exemple, la desoxiguanosina és el desoxiribonucleòsid de guanina, i la citidina és el ribonucleòsid de citosina.
D’altra banda, els nucleòtids s’anomenen anteposant a la denominació de la base la paraula àcid, que en descriu les propietats, i, si el sucre que hi ha és la ribosa, només es caracteritzen per la terminació -ílic. En cas que el sucre present sigui la desoxiribosa, s’afegeix el prefix desoxi- al nom de la base nitrogenada, igual que en el cas dels nucleòsids. Així, per exemple, el ribonucleòtid de citosina és l’àcid citidílic, i el desoxiribonucleòtid d’adenina és l’àcid desoxiadenílic. Lògicament, aquestes molècules, dotades de càrrega elèctrica, acostumen a estar dissociades i aleshores els escau la denominació amb la terminació -at; d’aquesta manera, els dos exemples esmentats corresponen al citidilat i al desoxiadenilat.
Àcid desoxiadenílic
Símbols: pdA, dAMP.
Àcid desoxiguanílic
Símbols: pdG, dGMP.
Àcid desoxicitidílic
Símbols: pdC, dCMP.
La M de monofosfat al·ludeix al fet que determinats nucleòtids de notable importància biològica contenen més d’una molècula d’àcid fosfòric, però no pas els que formen part dels àcids nucleics.
Àcid adenílic
Símbols: pA, AMP.
Nucleòtids de l’ARN
Àcid guanílic
Símbols: pG, GMP.
Àcid citidílic
Símbols: pC, CMP.
Àcid desoxitimidílic Símbols: pdT, dTMP.
Àcid uridílic
Símbols: pU, UMP.
Alguns nucleòtids particulars
Alguns nucleòtids que no formen part dels àcids nucleics es troben, tanmateix, en quantitats relativament importants en el citoplasma de les cèl·lules, on porten a terme missions metabòliques fonamentals però allunyades de la genètica. Entre aquests nucleòtids, destaca l’ATP (trifosfat d’adenosina), nucleòtid d’adenina esterificat no per un, sinó per tres grups fosfòrics. L’ATP actua en les cèl·lules com a intermediari entre les reaccions que alliberen energia i les que en consumeixen; expressat en una paraula, com a moneda energètica. L’enllaç que uneix el segon (β) i el tercer (γ) fosfats de la molècula d’ATP allibera per hidròlisi una gran quantitat d’energia.
L’ATP és el vehicle o vector energètic universal per a les transferències cel·lulars d’energia, però en àmbits més concrets alguns altres nucleòtids trifosfats acompleixen papers similars, com ara l’UTP (trifosfat d'uridina) en la síntesi dels glúcids, el CTP (trifosfat de citidina) en la dels lípids o el GTP (trifosfat de guanosina) en la de les proteïnes.
Alguns dinucleòtids, com ara el NAD (dinucleòtid de nicotinamida i adenina) i el seu derivat fosfat, el NADP (fosfat de dinucleòtid de nicotinamida i adenina), també tenen funcions molt importants. De fet, aquests dinucleòtids actuen com a coenzims en moltes reaccions d’oxidacióreducció, com a portadors d’ions hidrur, ja que alternen entre les seves formes oxidades o reduïdes (NAD+, NADP+ i, respectivament, NADH i NADPH).
El mononucleòtid de flavina (FMN) i el dinucleòtid de flavinai adenina (FAD) tenen uns papers similars. En el cas del denominat coenzim A, que té la important funció metabòlica de transportar grups acil, la molècula conté també, juntament amb l’àcid pantotènic i el b-aminoetanol, un nucleòtid (difosfat d’adenosina).
Per la seva banda, el denominat AMP cíclic (AMPc) és un nucleòtid d’adenina en el qual el grup fosfat es troba esterificant dos –OH de la ribosa, en els carbonis 3’ i 5’ (és, doncs, l’àcid 3’, 5‘ adenílic cíclic), i la seva funció en el metabolisme és actuar com a mediador en nombroses reaccions hormonals.
8.1. Identifica la fórmula que hi ha al marge.
8.2. Escriu la fórmula de la D-ribosa i la de la 2-desoxi-D-ribosa. En què es diferencien?
8.3. Què hem de fer per convertir l’àcid adenílic en ATP? Què hem de treure al GTP per fer-ne una guanosina? Què hem d’afegir a una citidina per fer-ne un CDP?
8.4. De les substàncies següents, digues quines són nucleòtids, el nom de cada una i on i com es troben:
Enllaç fosfodièster 5'-3'
Un àcid nucleic és un polinucleòtid, és a dir, un polímer lineal de nucleòtids units per mitjà d’enllaços covalents que s’estableixen entre l’àcid fosfòric d’un nucleòtid (que esterifica al seu torn el carboni 5’ de la pentosa) i el radical –OH del carboni 3’ de la pentosa d’un altre nucleòtid. Aquests enllaços 5’3’ configuren cadenes lineals de les quals pengen les bases nitrogenades.
És a dir, les cadenes estan constituïdes per l’alternança de desoxiribosa i fosfat, mentre que les bases nitrogenades en pengen a intervals regulars. En el cas de l’ADN, que està format per dues cadenes enfrontades, aquest fet implica l’aparellament de les bases.
Enllaç fosfodièster 5'-3'
Enllaç fosfodièster 5'-3'
Enllaç fosfodièster 5'-3'
Estructura primària d’un fragment d’àcid nucleic amb 5 nucleòtids.
Com que tots els enllaços dièster tenen la mateixa orientació 5’-3’, la cadena de nucleòtids té polaritat amb un extrem 5’ i un extrem 3’. L’inici de la cadena és l’extrem5’; els nous nucleòtids es van addicionant a l’extrem3’. Les cadenes creixen en sentit 5’→ 3’. Per conveni, les seqüències dels àcids nucleics s’escriuen començant per l’extrem5’, que va a l’extrem esquerre.
La funció de l’ADN és la de ser portador de la informació genètica, que serveix per especificar (codificar) la seqüència de les proteïnes i els àcids ribonucleics (ARN) de la cèl·lula i de l’organisme. Bona part d’aquestes proteïnes són enzims que permeten a la cèl·lula i a l’organisme de sintetitzar la resta de principis immediats que necessiti.
Així doncs, l’ADN programa de manera coordinada, al llarg de l’espai i al llarg del temps, la biosíntesi de tots els components cel·lulars o de l’organisme. En una paraula, serveix per determinar les activitats de l’ésser viu, tant pel que fa als aspectes genèrics, relatius a l’espècie biològica a què pertany, com als més específics, propis de l’individu. D’altra banda, tota la informació que un organisme rep dels pares és transmesa en forma d’ADN.
La informació genètica es troba en la seqüència dels nucleòtids que formen la molècula d’ADN.
Les molècules d’ADN tenen una elevadíssima massa molecular i estan constituïdes per dues cadenes enfrontades de nucleòtids de desoxiribosa. Aquests nucleòtids són d’adenina i de timina, en quantitats iguals, i de citosina i guanina, també en quantitats iguals. Ara bé, les proporcions relatives de A + T i de C + G varien en els diferents ADN, des del 36% fins al 70%.
Els procariotes tenen una gran molècula d’ADN que forma el cromosoma, mentre que els nuclis de les cèl·lules eucariotes contenen diverses molècules d’ADN, combinades amb proteïnes, les quals constitueixen la cromatina del nucli o els cromosomes que apareixen en el transcurs de la divisió cel·lular. La informació genètica que conté l’ADN consisteix en l’ordre en què es disposen els diferents nucleòtids en la cadena.
Les nucleases
Les nucleases són enzims que trenquen els enllaços existents entre els nucleòtids d’una cadena (enllaços fosfodièster) i tenen una gran utilitat, per això mateix, per a l’estudi i la recerca. Totes les cèl·lules tenen nucleases, habitualment confinades a l’interior dels lisosomes (orgànuls digestius rics en enzims hidrolítics), ja que, si no, farien malbé l’ADN i l’ARN. En el cos humà, són produïdes especialment pel pàncrees, que les aboca a l’intestí, on tenen una funció digestiva dels àcids nucleics de la dieta.
Les nucleases són unes eines molt útils per manipular els àcids nucleics en el laboratori. Algunes nucleases (les desoxiribonucleases) són específiques de l’ADN, mentre que unes altres (les ribonucleases) només ataquen les cadenes d’ARN. També n’hi ha que poden actuar tant sobre les cadenes d’ADN com d’ARN.
Una altra manera de classificar les nucleases és dividir-les en exonucleases i endonucleases. Les exonucleases només poden actuar als extrems de la molècula, desprenent els nucleòtids d’un a un (o en fragments petits), mentre que les endonucleases actuen sobre punts de l’interior de la cadena. Dins d’aquestes, les denominades endonucleases de restricció –produïdes principalment per bacteris– tenen una gran importància perquè són capaces de reconèixer punts específics. En unes altres paraules, identifiquen seqüències específiques de bases i hidrolitzen l’ADN només per aquells punts. Per exemple, la primera endonucleasa de restricció que es va conèixer, Eco RI, reconeix la seqüència 5’GAATTC3’ i trenca l’enllaç entre l’àcid guanílic i l’adenílic.
Des del seu descobriment, les endonucleases de restricció s’utilitzen profusament tant per a l’estudi de les molècules naturals ADN com per a la seva manipulació, en la tecnologia de l’ADN recombinant (enginyeria genètica).
Detalls de l’estructura en doble hèlix de l’ADN (conformació B).
3.3. L’estructura tridimensional
Excepte el cas d’alguns virus, que poden tenir com a material hereditari ADN monocatenari (constituït per un sol filament), la molècula d’ADN està formada per dos filaments, enrotllats en una doble hèlix, tal com van postular, l’any 1953, Watson i Crick. En aquest ADN dúplex, cada filament s’enrotlla a l’eix central imaginari d’esquerra a dreta (sentit dextrogir). En aquesta hèlix, la disposició de les dues cadenes és antiparal·lela: mentre l’una té una orientació 5’-3’, l’altra la té 3’-5’. La part exterior de l’hèlix està formada pels esquelets …pentosa-fosfat-pentosa-fosfat… de la cadena, mentre que les bases queden a la part interior, quasi perperdinculars a l’eix i enfrontades ordenadament. Aquesta doble hèlix té un diàmetre de 2,37nm, fa una volta completa cada 10,4 parells de bases, que ocupen una longitud de 3,40nm, de manera que cada base ocupa uns 0,33 nm i té un desfasament de 34,6°respecte de la següent.
L’analogia amb una escala de cargol és evident: l’esquelet de les pentoses i els fosfats de les dues cadenes de nucleòtids constitueix les dues baranes, mentre que cada esglaó està format aquí per dues bases
nitrogenades: les dels dos nucleòtids, de cadenes diferents, que queden enfrontats. La molècula d’ADN és molt estable, ja que mentre les cadenes pentosa-fosfat estan en contacte amb l’aigua circumdant, les bases nitrogenades, que són hidròfobes, queden resguardades a l’interior. Diverses forces dèbils donen estabilitat a la molècula d’ADN: els efectes hidrofòbics ja esmentats, les forces de van der Waals entre les bases apilades, els ponts d’hidrogen i la interacció amb alguns cations, en particular el Mg2+ .
En aquesta estructura, només encaixen determinats parells de bases, concretament l’adenina amb la timina (A-T) i la citosina amb la guanina (C-G), que s’uneixen, respectivament, per dos i tres ponts d’hidrogen. Donades les dimensions de l’hèlix, no poden quedar enfrontades dues purines (no hi cabrien) ni dues pirimidines (l’estructura quedaria baldera), però tampoc no es dóna cap dels altres enfrontaments teòrics possibles (A-C, T-G), ja que l’estructura química de les bases no permet l’establiment dels ponts d’hidrogen. Aquesta característica estructural de l’ADN explica que, tal com va descobrir Chargaff, el quocient A+G / T+C valgui sempre la unitat per a qualsevol molècula d’ADN. Precisament això té un gran significat fisiològic. Com que A s’aparella sempre amb T i C ho fa amb G, les dues cadenes són complementàries i, per tant, la seqüència de bases d’un filament determina la seqüència de l’altra. Aquesta complementarietat assegura la identitat de la informació genètica durant la replicació de l’ADN. Si l’ADN es copia fidelment, el mecanisme de l’herència funciona bé.
L’estructura descrita fins aquí correspon a la denominada conformació B de l’ADN, la descoberta per Watson i Crick i la més comuna en l’ADN cel·lular. Ara bé, algunes regions de l’ADN riques en parells de bases C-G adopten una configuració diferent, el Z-DNA (z de zig-zag), en què, tot i mantenir-se els mateixos aparellaments de bases, la doble hèlix és levogira, més llarga i estreta (diàmetre = 1,84 nm, 12 parells de nucleòtids per volta sencera i longitud de cada volta = 4,56 nm).
Actualment, s’ha aconseguit desxifrar la seqüència de bases de nucleòtids de tot el material hereditari d’alguns virus i el d’una dotzena d’organismes cel·lulars. El primer genoma sencer seqüenciat d’un organisme eucariota fou el del llevat Saccharomyces cerevisiae. Efectivament, el 1996, un equip de científics coordinat per A. Goffeau culminava un procés investigador que durà 66 mesos i amb un finançament de la Unió Europea de més de 20 milions d’euros. Sovint l’ADN dels virus comprèn de l’ordre d’uns 5000 a 10000 parells de bases. En el cas del virus φX174, que en té uns 5000, aquesta seqüència comença per CCGTCAGGAT, i si continuéssim la seva transcripció ens ocuparia tota una pàgina d’aquest llibre. Un bacteri
L’aparellament entre bases complementàries (A–T, C–G) assegura la identitat de la informació genètica.
Anàlisi d’ADN en gel d’electroforesi, utilitzant llum ultraviolada.
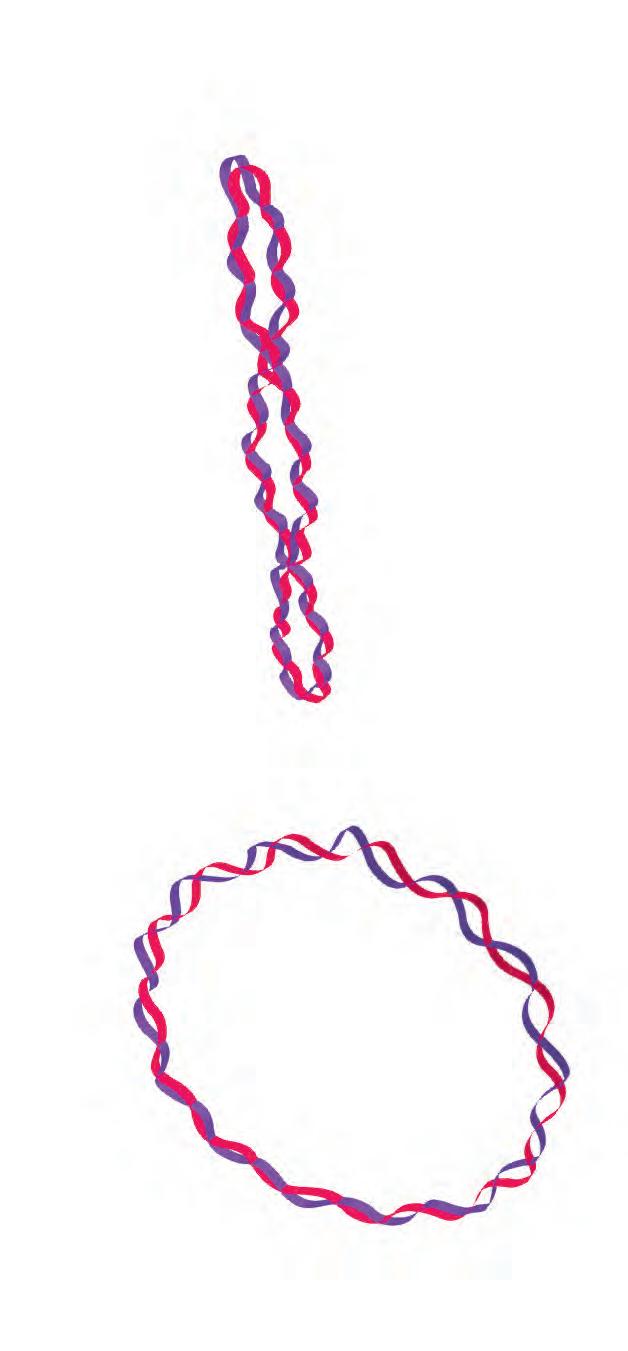
Superenrotllament de l’ADN dels procariotes.
com ara l’Escherichia coli té una molècula d’ADN constituïda per uns quatre milions de parells de nucleòtids i la seva transcripció ompliria un llibre d’unes 800 pàgines. L’ADN contingut en els cromosomes de cadascuna de les cèl·lules humanes requeriria una enciclòpedia de més de 500 o 1000 volums. Per això, en referir-se als nucleòtids que conformen l’ADN, es parla no només de parells de bases (pb), sinó també de milers de parells de bases (Kpb).
Aquestes xifres exorbitants ens il·lustren la complexitat i la fragilitat d’aquestes molècules, l’estudi de les quals demana tècniques de laboratori molt precises, i la necessitat física que l’ADN es trobi molt redoblegat a l’interior de les cèl·lules perquè, si no, no hi cabria. Així, per exemple, l’esmentada molècula de quatre milions de parells de nucleòtids que és l’ADN d’Escherichia coli té una longitud d’1,4 mm, unes set-centes vegades la longitud del bacteri. Els bacteris, els mitocondris, els cloroplastos i alguns virus tenen molècules d’ADN circular perquè els extrems de la llarga cadena s’uneixen entre ells per mitjà d’enllaços 5’-3’. Aquestes molècules circulars es repleguen sobre elles mateixes per l’establiment de nombrosos llaços que es fan en unir-se punts allunyats de la cadena per mitjà de proteïnes i, especialment, per una força de torsió, el superenrotllament.
De fet, és com si la doble hèlix s’hagués recargolat abans que s’unissin tots dos extrems. Intuïtivament ens en farem una idea si pensem en l’enrotllament que es produeix a vegades en el cable de telèfon o en el d’alguns electrodomèstics, tensionat per l’ús i la posició, de manera que l’ADN queda amb una quantitat d’energia addicional continguda.
Una classe particular d’enzims presents en procariotes i eucariotes, ADN-topoisomerases, determina el grau de redoblegament de l’ADN, ja que catalitzen l’eliminació o la introducció dels superenrotllaments. Són molt importants perquè el grau de superenrotllament fa que determinats enzims o altres proteïnes s’uneixin o no a l’ADN i, per tant, que tinguin lloc o no determinats processos que necessiten el desenrotllament de l’hèlix, com ara la replicació i la transcripció de l’ADN. Els bacteris, a més de la gran molècula d’ADN que és el cromosoma, contenen quantitats variables, generalment petites, d’ADN autònom, en forma de petites molècules d’ADN circular, els plasmidis, que es troben deslligats de l’ADN cromosòmic i tenen una existència independent al llarg de les divisions cel·lulars en les quals, un cop replicats, són transmesos a les cèl·lules filles. De vegades, però, els plasmidis poden integrar-se en l’ADN cromosòmic i, també, poden ser transferits des d’una cèl·lula a una altra, fins i tot d’espècie diferent. Els plasmidis poden ser manipulats amb una relativa facilitat i per aquest motiu constitueixen un bon auxiliar en les tècniques de l’enginyeria genètica, les quals es basen sovint en la utilització d’ADN recombinant. Aquest ADN s’aconsegueix mitjançant la introducció en un plasmidi de gens d’altres procedències. Una vegada que es troba de nou a l’interior d’un bacteri, el plasmidi pot induir la producció de la proteïna codificada pel gen forani.
3.5. L’ADN dels eucariotes
Les cèl·lules eucariotes tenen una quantitat molt més elevada d’ADN que no pas els bacteris. Respecte de l’esmentada Escherichia coli, cada cèl·lula de la mosca del vinagre o Drosophila melanogaster en té 25 vegades més i cada cèl·lula humana, pel cap baix, unes 500 vegades més, encara que en els animals hi ha molt ADN repetitiu i, en canvi, el nombre de gens no és proporcionalment molt més gran. De fet, la longitud total de contorn de l’ADN d’una cèl·lula humana és d’uns dos metres. Ja es comprèn que ha de presentar un grau d’empaquetament formidable, i que amb explicacions com ara el superenrotllament no n’hi ha prou.
L’ADN es troba en el nucli cel·lular, on forma la cromatina en associació amb les histones, unes proteïnes alcalines. Quan la cèl·lula es divideix, la cromatina canvia d’aspecte i dóna lloc als cromosomes, però de fet són la mateixa substància. L’estructura de la cromatina és molt important, perquè permet l’empaquetament de l’ADN dels eucariotes. La cromatina està formada per fibres llargues i primes de 30 nm de diàmetre i, aproximadament, 1 o 2 mm de longitud. Si les ampliéssim un milió de vegades, tindrien 3 cm de diàmetre i 20 km de longitud! A aquesta mateixa escala el nucli d’una cèl·lula humana tindria 9 m de diàmetre i encabiria, és clar, no un sinó 46 d’aquests cables de 20 km!
La cromatina té una estructura de collaret de granadura en què les histones tenen un paper clau, tal com van mostrar els estudis d’Aaron Klug i els seus col·laboradors, amb els quals van guanyar el Premi Nobel de Química de 1982. D’histones, n’hi ha de cinc tipus: H1, rica en lisina; H2A i H2B, riques en lisina i arginina, i H3 i H4, més riques en arginina. De cadascuna, n’hi ha milions de còpies en cada nucli. Tant la microscòpia electrònica i l’anàlisi dels patrons de difracció de raigs X, com la hidròlisi i altres proves bioquímiques, revelen que les «perles» que es repeteixen en aquest collaret són els nucleosomes, constituïts per dues còpies de cada histona i un fragment d’ADN d’uns 200 parells de bases. L’estructura del nucleosoma –tal com mostren les il·lustracions de la pàgina 249– és la següent: dues còpies de cadascuna de les 4 histones Core (H2A, H2B, H3 i H4), però no de l’H1, formen un octàmer sobre el qual fa dues voltes un segment d’ADN d’uns 150 parells; aquesta estructura rep el nom de nucleosoma límit, medul·la o partícula central. La resta d’ADN forma l’anomenat ADN espaiador, que estableix la transició cap al nucleosoma següent i sobre el qual se superposen les H1, que li donen estabilitat. Els nucleosomes es disposen ordenadament, l’un rere l’altre, en llargs filaments o cadenes d’un gruix d’uns 10 nm; de fet, no representen sinó un primer nivell d’empaquetament de l’ADN, ja que aquests fila-
La cromatina nuclear i la informació genètica
La cromatina del nucli cel·lular es pot trobar en dues formes:
– Eucromatina. N’és la forma interfàsica menys condensada. Es troba disseminada en el nucli (es tenyeix poc o gens amb els colorants del nucli). Representa la forma activa de la cromatina, la que s’està transcrivint. La majoria de gens actius es troben, per tant, en l’eucromatina.
– Heterocromatina. És una forma condensada i inactiva de la cromatina, que no s’altera al llarg del cicle cellular. Sovint es localitza a la perifèria del nucli i es tenyeix intensament amb els colorants nuclears. N'hi ha de dos tipus: Constitutiva. Idèntica per a totes les cèl·lules de l’organisme. Formada principalment per seqüències repetitives, no té informació genètica pròpiament dita; inclou els telòmers i els centròmers dels cromosomes que no expressen el seu ADN. Facultativa. Diferent en els diferents tipus de cèl·lules de l’organisme. Formada per gens que no s'expressen (però que poden fer-ho en un moment donat). El corpuscle de Barr (cromosoma X inactiu de les $ dels mamífers) n’és un exemple.
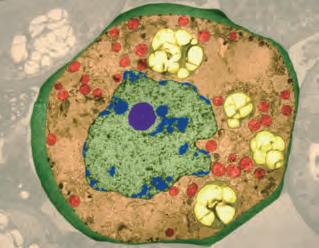
Cèl·lula vegetal (en fals color) vista al microscopi electrònic de transmissió. El nucli (en verd i blau) mostra els dos tipus de cromatina i també un nuclèol (porpra); al citoplasma, hi destaquen els mitocondris (vermell) i –dins dels corresponents plastidis– uns grans de midó (groc clar). Destaca, així mateix, la paret vegetal (verd fosc) (950 x).
Empaquetament de nucleosomes
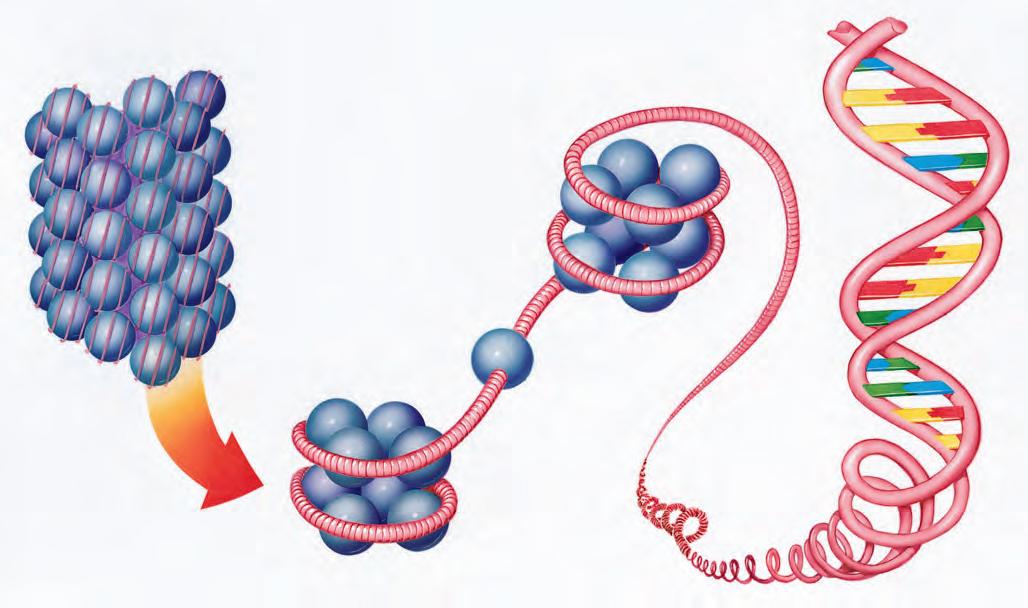
L’ADN dels eucariotes està superempaquetat, juntament amb molècules d’histones. Vuit unitats d’aquesta proteïna formen un nucli sobre el qual la cadena de l’ADN dóna dues voltes. Cada unitat així constituïda és un nucleosoma. Entre nucleosoma i nucleosoma hi ha una altra molècula d’histona (H1). Els nucleosomes, al seu torn, estan fortament empaquetats, tal com suggereix la part esquerra del dibuix.
ments de nucleosomes es poden enrotllar en ziga-zaga o, encara més freqüentment, en un solenoide (amb una forma que recorda la d’una llarga molla helicoïdal), en el qual a cada volta hi ha 6 nucleosomes arrenglerats gràcies a la disposició en un hexàgon de les corresponents histones H1 que n’estabilitzen l’estructura. El gruix de la fibra de solenoides és d’uns 30 nm.
Al seu torn, els solenoides s’empaqueten en una mena de «supersolenoides» d’uns 400 a 700 nm de diàmetre que constitueixen, ara ja sí, les fibres cromosòmiques. De fet, quan s’observen microfotografies de cromosomes metafàsics en què s’han eliminat les histones, es veu un esquelet o armadura central («scaffold») de proteïnes fibroses rodejat d’un «halo» extens d’ADN que forma llaços o dominis que entren i surten de l’esquelet pràcticament pel mateix punt.
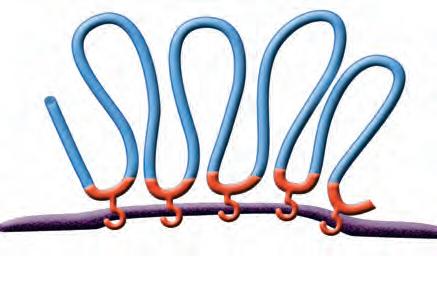
Unió dels dominis a l’armadura a través de les regions SAR.
L’anàlisi molecular confirma que aquests dominis són d’ADN, que s’uneixen a l’armadura per unes regions d’associació específiques (abreujadament dites SARs) i que entre
Posició de l’H1 i de l’octàmer en el nucleosoma (esquerra) i detall de la medul·la del nucleosoma (dreta).
les proteïnes de l’armadura n’hi ha de diferents tipus, entre les quals diversos enzims com les topoisomerases (un 10% de les proteïnes cromosòmiques són de naturalesa diferent a les histones).
Se sap, d’altra banda, que l’ARN té també un paper en el plegament de l’ADN.
A més de l’ADN nuclear, en les cèl·lules eucariotes hi ha petites quantitats d’ADN dúplex circular en els mitocondris (i en el cas de les plantes, en els cloroplastos) que no superen generalment el 0,1% de l’ADN total. Aquest ADN codifica els àcids ribonucleics d’aquells orgànuls, però només unes quantes de les seves proteïnes específiques; el 95% de les proteïnes dels mitocondris són codificades per l’ADN nuclear.
L’ADN mitocondrial o ADNmt és una molècula, de doble hèlix, circular i relativament petita (més en els animals que no pas a les plantes). El de l'espècie humana té 16800 pb. Dins de cadascun dels mitocondris de les cèl·lules humanes hi ha un nucleoide amb 5 molècules d’ADNmt.
S’anomena valor C d’una determinada espècie biològica el contingut d’ADN d’un dels seus gàmetes (o equivalent, cas d’espècies de reproducció asexual). Aquest valor oscil·la moltíssim d’una espècie a una altra, amb variacions erràtiques si comparem les quantitats presents en diversos organismes d’un grup amb les d’altres de grups diferents. Per exemple: entre les plantes i les salamandres hi ha valors molt diferents, però alguns d’aquells vegetals i animals tenen un valor C superior a l’humà. Ara bé, si, dins de cada grup d’organismes (bacteris, llevats, amfibis... mamífers), escollim aquells que tenen un menor valor C podem comprovar com, aleshores, la quantitat d’ADN augmenta amb la complexitat evolutiva. Com si per pertànyer a un determinat grup taxonòmic (i més enllà de les possibles repeticions o redundàncies) fes falta una quantitat mínima d’ADN.
Octàmer d’histones 30 nm 10 nm
Nucleosoma
Empaquetament dels nucleosomes: el solenoide.
Nucleosomes
Armadura proteïca
Armadura proteïca i estructura del cromosoma.
L’enorme quantitat d’ADN present en les cèl·lules eucariotes es troba fortament empaquetat. Els nucleosomes (constituïts per ADN i histones) en són un primer nivell.
Plantes amb flors Aus Mamífers
Rèptils
Amfibis
Peixos ossis
Crustacis
Insectes
Mol·luscs
Fongs
Llevats
Bacteris
Micoplasmes
Octàmer histones
ADN
Solenoide
ADN Nucleosomes 30 nm
Armadura
Solenoide 30 nm
101010101010 67891011
Micoplasma Bacteri
Llevat Fong Insecte Au Amfibi
Mamífer
101010101010 67891011
Variació de la quantitat d’ADN (pb) en diferents grups taxonòmics.
Espècie amb menys contingut d’ADN (valor C) dins de cada grup taxònomic. ADN
Mida del genoma en parells de bases
Els àcids ribonucleics (ARN) estan constituïts, igual que l’àcid desoxiribonucleic, per llargues cadenes de nucleòtids. En aquest cas, però, es tracta de ribonucleòtids units mitjançant enllaços fosfodièster 5’-3’. En aquest sentit, la composició de l’ARN és molt similar a la de l’ADN. Se’n diferencia, però, en tres punts bàsics:
a) la pentosa dels nucleòtids és la ribosa i no la desoxiribosa;
b) pel que fa a les bases, també n’hi ha quatre de comunes: A, C, G i U (l’uracil substitueix la timina de l’ADN);
c) les molècules d’ARN, sovint força més petites que les d’ADN, estan formades generalment per un únic filament.
Ara bé, en aquesta única cadena d’ARN, amb freqüència es produeixen aparellaments de bases d’acord amb les normes de Watson i Crick (A amb U i C amb G), la qual cosa determina l’existència de freqüents forquetes i bucles, que semblen tenir un paper important en el reconeixement de l’ARN per proteïnes. També hi ha algunes molècules d’ARN bicatenàries, amb una estructura en doble hèlix similar, però no ben bé igual, a la de l’ADN.
Tret d’alguns virus que contenen ARN com a material hereditari, dipositari de la informació genètica, en els organismes cel·lulars l’ARN no té el paper de material hereditari, propi de l’ADN, però participa en el procés d’expressió d’aquesta informació.
Les tres classes principals d’ARN cel·lular són les següents:
– ARN missatger o ARNm. L’ARN missatger transporta la informació genètica de l’ADN als ribosomes, orgànuls cel·lulars on es produeix la síntesi de proteïnes, en la qual l’ARNm actua com a matriu. La seva seqüència de nucleòtids és complementària a la d’un segment específic d’ADN (gen). En una cèl·lula eucariota hi pot haver més de 10000 gens diferents.
– ARN ribosòmic o ARNr . L’ARN ribosòmic suposa gairebé el 75% del total cel·lular d’ARN i és part constitutiva principal dels ribosomes. D’ARNr se’n coneix de tres mides diferents en els bacteris, i de quatre mides diferents en les cèl·lules eucariotes.
– ARN de transferència o ARNt. L’ARN de transferència, també dit ARN soluble,
Bases
Estructura en forqueta, per aparellament de bases, que es forma en les molècules d’ARN monocatenari.
Braç i llaç D
Braç acceptor
Braç i llaç anticodó
Abreviatures de bases no estàndard:
R, purina
Y, pirimidina
bases modificades ψ, pseudopurina
D, dihidrouridina
Estructura secundària, en forma de fulla de trèvol, de l’ARNt (a).
Estructura terciària tridimensional, en L, de l’ARNt (b).
Braç i llaç Tψ C
Llaç variable
transporta els aminoàcids que són afegits a les cadenes peptídiques en creixement durant la síntesi de proteïnes. Fa una funció d’intermediació o «adaptació» en la traducció a proteïna de la informació continguda en l’ARNm. N’hi ha com a mínin una classe per cadascun dels 20 aminoàcids constitutius de les proteïnes.
Els ARNt són molècules relativament petites formades per ribonucleòtids, entre 73 i 95, alguns dels quals són portadors de bases modificades, amb una configuració en trèvol que, com que està molt plegada, adopta una estructura tridimensional en L. Aquest doblegament és degut a aparellaments de bases de Watson i Crick i a altres interaccions diferents.
En el nucli de les cèl·lules eucariotes hi ha, a més, altres classes d’ARN. Es tracta dels àcids ribonucleics heterogenis o ARNnh, molècules grosses que són les precursores dels ARNm, i dels denominats àcids ribonucleics nuclears petits o ARNpn, que participen en el procés de maduració de l’ARNm.
En el citoplasma de les cèl·lules eucariotes, hi ha també altres ARN petits, alguns dels quals tenen un paper estructural, mentre que d’altres tenen una funció catalítica.
L’anàlisi de l’ADN i la tècnica PCR
L’any 1954, Frederick Sanger, després d’haver posat a punt, durant molts anys de feina, un mètode per desxifrar la seqüència d’aminoàcids de les proteïnes, va establir per primera vegada la seqüència d’una proteïna, la insulina bovina. Li va ser concedit el seu primer premi Nobel, de química, l’any 1958. Més tard, va posar a punt un mètode per seqüenciar les cadenes de nucleòtids de l’ADN i va guanyar el segon Nobel, l’any 1980. El mètode enzimàtic de Sanger es basa en el coneixement del procés de duplicació de l’ARN i en l’ús d’alguns enzims implicats en aquest procés. Com moltes altres tècniques de biologia molecular, utilitza marcadors radioactius (en aquest cas el 32P) per seguir la pista de l’ADN. A més d’aquest mètode enzimàtic, existeixen altres tècniques per determinar l’estructura primària (seqüència) de l’ADN, com ara el mètode químic de Maxam i Gilbert. De fet, s’ha evolucionat tan ràpidament en aquest camp que actualment es pot fer en qüestió de dies, i de manera automàtica, allò que uns decennis enrere costava tot un any de feina, així que s’ha aconseguit molt abans que no semblava (l’any 2000) la primera part del denominat Projecte Genoma Humà: desxifrar la seqüència dels 3,3 × 10 9 parells de nucleòtids que componen el nostre genoma. Si bé aquest projecte, que té un interès enorme, no portarà cap benefici pràctic immediat, és molt probable que en les pròximes dècades ajudi a descobrir nous medicaments o noves teràpies per guarir malalties hereditàries.
El que sí ha comportat una autèntica revolució pràctica és la denominada tècnica de la PCR, inicials d’una expressió anglesa que traduïda al català vol dir «reacció en cadena de la polimerasa». Es tracta d’un enginyós procediment de laboratori que va ser ideat per Kary Mullis (premi Nobel de química l’any 1993) i que es basa en l’activitat de determinats enzims polimerases. Aquesta tècnica permet obtenir ràpidament nombroses còpies de quantitats minúscules d’un fragment d’ADN, tan petites que n’hi ha prou, per exemple, amb l’ADN contingut en el nucli d’una sola cèl·lula. Quan se’n disposa en quantitat suficient, es procedeix a comparar-lo amb la mostra diagnòstica.
La PCR s’ha revelat molt útil en la recerca en enginyeria genètica, ja que permet multiplicar ràpidament el fragment d’àcid nucleic desitjat, però també en el domini pràctic, ja quepermet establir diagnòstics ràpids i primerencs, com en el cas de la infecció pel virus de la sida. Amés, ha revolucionat la medicina forense, ja que permet identificar persones a partir de mostres minúscules de sang seca, pèls o semen. L’anàlisi de l’ADN permet la identificació amb un grau elevadíssim de fiabilitat, tret dels bessons idèntics. També s’ha començat a aplicar amb èxit en l’estudi dels fòssils i de les restes arqueològiques.
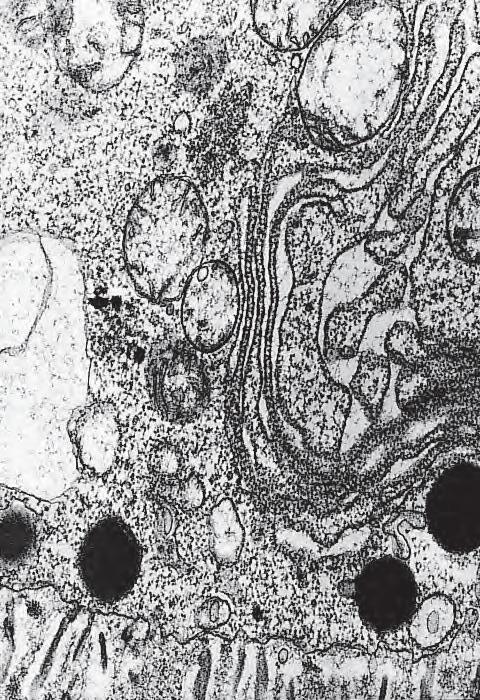
Ribosomes lliures en el citoplasma d’una cèl·lula eucariota en la qual s’observen estructures membranoses.
Tots els organismes emmagatzemen la informació hereditària en forma d’ADN. Tanmateix, alguns virus, excepcionalment, utilitzen l’ARN.
8.5. Donada la seqüència d’un filament d’ADN dúplex ACCGTGGATCG, escriu correctament... a)...la seqüència del filament complementari; b)...la seqüència del corresponent ARNm.
8.6. L’ADN d’un determinat virus bacteriòfag té una massa molecular de 130 milions, mentre que la càpsida d’aquest virus, a l’interior de la qual hi ha l’ADN, té una longitud de 100 nm. Si sabem que la massa molecular d’un parell de nuclèotids és al voltant de 650, calcula la longitud total de l’ADN del virus i compara-la amb la longitud de la seva càpsida.
8.7. Una determinada mostra d’ADN d’origen animal conté un 28% d’adenina en mols. Quines són les proporcions de les altres bases?
8.8. Com es pot desfer, en el laboratori, el superenrotllament d’un ADN circular de virus?
8.9. Donada la seqüència ACCGTCCGTGGAACT d’un filament d’ADN dúplex, contesta a les preguntes següents:
a)Quin enzim hauríem d’emprar per obtenir els nucleòtids terminals de A o T?
b)Quin enzim hauríem d’emprar per fer-ne dos fragments?
8.10. En un tub d’assaig que conté molècules d’ADN 5’ATCGCCCTT3’ en solució aquosa, hi afegim una exoribonucleasa. Quins nucleòtids lliures obtindrem?
8.11. Relaciona cada terme del primer grup amb un terme del segon grup:
Primer grup: ARNr, NAD, ADN, CMP, dTMP, ARNm.
Segon grup: ribonucleòtid, àcid nucleic, dinucleòtid, desoxiribonucleòtid.
8.12. Observa la seqüència de la il·lustració següent, que correspon a un fragment de l’estructura primària de l’ADN, i resol les qüestions que hi ha a continuació:
8.13. Escriu un ARNm resultat d’aquest ADN: 5’ TTAATACGTCC... 3’3’ AATTATGCAGG... 5’
8.14. Assenyala la resposta correcta per a cada una de les qüestions següents:
1)Quin d’aquests nucleòtids pot formar part de l’ADN?
a)L’àcid adenílic.
b)L’àcid desoxiadenílic.
c)L’adenosín monofosfat.
d)El mononucleòtid de flavina.
2)Una determinada mostra d’ADN d’origen animal conté un 28% d’adenina, en mols. Quines són les proporcions de les altres bases?
a)No es poden saber.
b)El 28% de timina, el 22% de citosina i el 22% de guanina.
c)El 28% de guanina, el 22% de citosina i el 22% d’adenina.
d)Cap de les respostes anteriors no és correcta.
a)Què és exactament aquesta seqüència? Quantes subunitats la formen?
b)Quin és l’extrem 3’ i quin, l’extrem 5’?
c)Com s’escriuria, abreujadament, aquesta seqüència?
d)Escriu amb tots els detalls la seqüència del filament complementari i estableix-ne els extrems 5’ i 3’.
e)Assenyala els tipus d’enllaços que intervenen en la formació de cada nucleòtid i en la unió de dos nucleòtids contigus per formar la cadena polinucleotídica; a continuació, explica’ls.
f)En què ens basem per afirmar que es tracta d’ADN i no d’ARN? En què es diferencia una cadena polinucleotídica d’ADN d’una altra d’ARN?
g) Escriu l’equivalent en ARN de la cadena d’ADN original.
h)La cadena que es transcriu d’una molècula d’ADN té 100000 nucleòtids, dels quals el 29% són guanina; el 21%, citosina; el 29%, adenina, i el 21%, timina. Determina el percentatge de bases de l’ARN transcrit. En què et bases per deduir-lo?
3)L’estructura secundària en hèlix-a de l’ADN es presenta enrotllada al voltant d’un cilindre imaginari, de manera que...
a)...a cada volta d’hèlix (pas de rosca) hi ha 3 nucleòtids que s’estenen al llarg de 0,54 nm.
b)...a cada volta d’hèlix (pas de rosca) hi ha 10 nucleòtids que s’estenen al llarg de 0,54 nm.
c)...a cada volta d’hèlix (pas de rosca) hi ha 3 nucleòtids que s’estenen al llarg de 0,33 nm.
d)...a cada volta d’hèlix (pas de rosca) hi ha 10 nucleòtids que s’estenen al llarg de 3,4 nm.
4)Un filament d’una molècula d’ADN dúplex té aquesta seqüència: 5’ACC–GTG–GAT–CG3’. Quina és la seqüència de l’altre filament?
a)5’TGG–CAC–CTA–GC3’.
b)5’ACC–GTG–GAT–CG3’.
c)3’ACC–GTG–GAT–CG5’.
d)3’TGG–CAC–CTA–GC5’.
5) Donat el mateix filament d’ADN dúplex de la pregunta anterior, 5’ACC–GTG–GAT–CG3’, digues, sense tenir en compte l’ordre, és a dir, sense tenir en compte on és el principi i el final, quina
seria la seqüència del corresponent ARN missatger:
a) TGG–CAC–CTA–GC.
b) ACC–GTG–GAT–CG.
c) ACC–GUG–GAU–CG.
d) UGG–CAC–CUA–GC.
6) Donada la seqüència ACC–GTC–CGT–CCTAGC d’un àcid nucleic, quin enzim haurem d’utilitzar per obtenir els nucleòtids terminals A i C?
a) Una endodesoxiribonucleasa.
b) Una exodesoxiribonucleasa.
c) Una endoribonucleasa.
d) Una exoribonucleasa.
7) Quants parells de bases té una molècula d’ADN dúplex amb una longitud total de 20 mm?
a) Uns 5 milions de parells de nucleòtids.
b) Al voltant de 50 milions de parells de nucleòtids.
c) Uns 500 milions de parells de nucleòtids.
d) Al voltant de 5000 milions de parells de nucleòtids.
8.15. L’ADN del nucli cel·lular està format per unes molècules enormes: els cromosomes. Per tal de poderse encabir a l’interior d’aquell orgànul cal que estigui superenrotllat. Si el poguéssim desenrotllar, veuríem que la seva longitud real (longitud de contorn) és enorme. La longitud de contorn total de l’ADN d’una cèl·lula humana és d’uns dos metres. Quina és la longitud de l’ADN d’una persona adulta? Compara aquest valor amb magnituds com ara el perímetre de l’equador terrestre, la distància entre la Terra i la Lluna o la distància entre la Terra i el Sol.
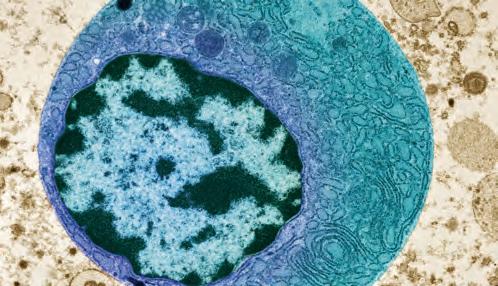
8.16. Llegeix aquest dossier de premsa fictici i després contesta a les preguntes que hi ha a continuació:
ASSASSINATDELPUB VICTORIA
«Déu vulgui que no en surtis!» Aquesta va ser una de les imprecacions més suaus que van exclamar alguns dels familiars de dues de les persones assassinades pel suposat autor del crim, John Smith, el judici del qual va començar ahir a Londres. Els nervis dels familiars de les víctimes, els cossos de les quals no s’han trobat mai, es van encendre davant l’actitud de l’acusat. Sense immutar-se, Smith va negar ser autor dels crims del pub Victoria, que ell regentava, i que van succeir l’any 1983. Les dues persones assassinades van ser el propietari del pub, a qui l’acusat devia diversos mesos de lloguer, i un recaptador d’impostos.
El propietari va ser assassinat a la cuina del pub, que aquell dia era tancat al públic. La mort del recaptador, segons l’acusació, va tenir lloc cinc dies més tard, també al pub, però al soterrani.
En preguntar-li per què va demanar que li deixessin un cotxe «amb un portaequipatge gran», l’acusat va respondre: «L’endemà volia anar al camp amb una amiga i els seus fills.» No va respondre sobre un ganivet de grans dimensions desaparegut de la cuina del pub. I, respecte a la mala olor i unes mosques grans que van envair el local uns quants dies després de les dues desaparicions, l’acusat va declarar: «La mala olor procedia de la instal·lació de la cuina i les mosques, d’una desratització recent.»
Quan es va escorcollar el local, a primera vista semblava net. Malgrat tot, una inspecció policíaca acurada va trobar les restes minúscules de sang entre les juntures de les rajoles del local. En analitzar-la, les seves característiques coincidien amb les que es mostraven en els historials clínics de les víctimes. El judici continuarà avui.
Dos inspectors del grup de policia científica van aportar ahir encara més indicis contra l’acusat del doble crim del pub Victoria. Els agents van trobar restes de sang al soterrani. El fiscal, que demana per a l’acusat 71 anys de presó, sosté que va assassinar i esquarterar un recaptador d’impostos i el propietari del seu local per eliminar els deutes que ambdós li reclamaven.
Un cop establert el suposat mòbil, i sense haver trobat els cadàvers, les proves d’ADN –les restes de sang descobertes per la policia coincideixen amb el perfil genètic de les víctimes– i el feix de proves circumstancials seran decisives a l’hora de dictar sentència.
L’acusació particular afirma que després d’esquarterar els cadàvers, els va ficar en bosses de plàstic i a continuació en una maleta gran, que va arrossegar fins al cotxe, estacionat en un aparcament. Finalment, va dipositar les bosses en uns contenidors d’escombraries.
Segons els advocats, la prova pericial sobre les restes de sang trobades al soterrani del bar, que es corresponien amb les de les víctimes, «serà determinant».
Sense cadàver no hi ha assassinat. Així es poden resumir les dificultats que plantejava la imputació de les dues desaparicions. Després d’haver-se trobat restes de sang humana al soterrani del local mitjançant una inspecció acurada, la fiscalia i l’acusació particular iniciaren –un cop estudiat l’historial clínic dels dos desapareguts– la recerca de mostres orgàniques de les dues víctimes.
El propietari del pub havia estat objecte, anys enrere, d’una biòpsia pulmonar en un hospital públic, on el servei d’anatomia patològica conservava, efectivament, mostres del teixit analitzat. D’altra banda, al recaptador d’impostos se li havia extirpat, poc temps abans de desaparèixer, un tumor que s’havia analitzat en una clínica privada. En aquest centre mèdic els investigadors de la policia han obtingut també mostres per procedir a la comprovació.
Al laboratori d’anàlisis de la policia es va dur a terme la prova de la PCR a partir de l’ADN trobat a les restes de sang descobertes al pub; el contrast amb les mostres preservades va donar positiu en ambdós casos: l’ADN era el mateix. L’acusació espera que, quan es reprengui el judici previst per a la setmana vinent, aquesta prova resulti definitiva.
a)Què significa PCR? Quines utilitats té?
b)Què s’analitza amb la prova de la PCR?
c)Per què era tan important en aquest cas trobar mostres orgàniques dels desapareguts?
d)Amb quina altra mena de mostres s’hauria pogut comparar l’ADN trobat?
e)Quin valor pot tenir la prova de la PCR en un cas com aquest?
f)Què demostra el fet que en aquest cas el resultat de la prova hagi estat positiu?
La tècnica de la centrifugació és un complement necessari –per concentrar el possible ADN que hi pugui haver en una hipotètica mostra– en qualsevol prova d’identificació per mitjà de les empremtes genètiques.
g)Quina altra mena de casos pot ajudar a aclarir? Raona la resposta.
8.17. La successió de tres nucleòtids en l’ADN determina un aminoàcid de la proteïna corresponent. Quina seria, doncs, la massa molecular aproximada que hauria de tenir el fragment d’ADN dúplex que conté la seqüència que codifica per un enzim de 164 aminoàcids?
8.18. Respon a les preguntes següents:
a)Quantes citosines (C) tindrà una molècula d’ADN (de doble cadena) de 1000 parells de bases de longitud si el 20% de la molècula està format per adenines (A)? Justifica la resposta.
b)Quant valdrà la relació (A + G)/(T + C)? Per què?
c)¿Creus que dues molècules d’ADN amb la mateixa composició de bases i la mateixa longitud poden portar informació genètica diferent? Per què?
8.19. Si un fragment d’ADN dúplex de 1000 parells de nucleòtids pesa, aproximadament, 1 × 10–18 g, calcula quant pesa el cromosoma d’Escherichia coli i l’ADN total del nucli d’una cèl·lula humana.
8.20. Explica en quin any i en quines circumstàncies es va produir cada un dels esdeveniment següents, els quals van ser determinants en la història del coneixement dels àcids nucleics:
a)descobriment de la «nucleïna» (ADN);
b)confirmació que l’ADN és el material hereditari;
c)descobriment de l’estructura en doble hèlix de l’ADN;
d)seqüenciació completa del genoma humà.
8.21. A les mitocòndries hi ha ADN. Quines característiques singulars té aquest ADN? Com penses que s’hereta, per via paterna o per via materna?
8.22. Explica quines diferències hi ha entre l’eucromatina i l’heterocromatina
8.23. En la taula de sota s’estableix la composició de bases (en tant per cent) de quatre virus. Determina en cada cas si el virus conté ADN i ARN i si l’àcid nucleic és de cadena senzilla o de cadena doble.
8.24. Comenta i digues si són certes o falses aquestes afirmacions:
a) Els mamífers són els organismes que tenen més ADN.
b) Hi ha una relació entre complexitat evolutiva i quantitat d’ADN.
1. Una vegada llegit el text següent, contesta a les preguntes que hi ha a continuació:
L’ESTRUCTURAMOLECULAR
DELSÀCIDSNUCLEICS
Volem suggerir una estructura per a la sal de l’àcid desoxiribonucleic (ADN). Aquesta estructura té característiques noves que són de considerable interès biològic.
Ja Pauling i Corey han proposat una estructura per a l’àcid nucleic. Segons el nostre parer, aquesta estructura no és satisfactòria. […]
Nosaltres volem proposar una estructura radicalment diferent. Aquesta estructura té dues cadenes helicoïdals, enrotllades al voltant del mateix eix. Hem adoptat les assumpcions químiques habituals, és a dir, que cada cadena consta de grups fosfodièster que s’uneixen amb residus de b-D-desoxiribosa per mitjà d’enllaços 3’, 5’. Les dues cadenes (però no les seves bases) estan relacionades per un radical bivalent perpendicular a l’eix de la fibra. Ambdues cadenes formen hèlixs dextrogires, però a causa del radical bivalent, les seqüències dels àtoms a les dues cadenes van en direccions oposades. […]
Les bases són a l’interior de l’hèlix i els fosfats, a l’exterior. Hi ha un residu a cada cadena, a cada 3,4 Å en la direcció Z. Hem suposat que hi ha un angle de 36°entre dos residus veïns en la mateixa cadena, de manera que l’estructura es repeteix al cap de 10 residus a cada cadena, és a dir, al cap de 34 Å. La distància d’un àtom de fòsfor a l’eix de la fibra és de 10 Å.
L’estructura és oberta i el seu contingut d’aigua és més aviat elevat. En continguts baixos d’aigua esperaríem que les bases es desplacessin, de manera que l’estructura podria esdevenir més compacta.
La nova característica de l’estructura és la manera com les cadenes són mantingudes unides per les bases puríniques i pirimidíniques. […]
Dit d’una altra manera, si una adenina forma un membre d’un parell, a qualsevol de les dues cadenes, llavors amb aquestes assumpcions l’altre membre ha de ser timina; de la mateixa manera passa amb la guanina i la citosina. La seqüència de bases d’una sola cadena no sembla que sigui restringida en cap aspecte. Tanmateix, si només es poden formar parells específics de bases, cal assumir que, si es dóna la seqüència de bases d’una cadena, queda automàticament determinada la seqüència de l’altra cadena.
S’ha trobat experimentalment que, en l’ADN, la raó de les quantitats d’adenina amb les de timina i la de les de guanina amb les de citosina són sempre molt pròximes a la unitat. No ens ha passat pas desapercebut que l’aparellament específic que hem postulat suggereix un possible mecanisme de còpia del material genètic.
J. WATSONI F. CRICK, Nature (1953)
a)Què expliquen els autors en aquest article? Fesne un resum breu.
b)L’any 1953, el contingut de l’article era una novetat absoluta. Per què? Què se’n sabia, de l’ADN?
c)En què es van fonamentar Watson i Crick per fer les seves hipòtesis? Quins precedents hi havia?
d)El descobriment de Watson i Crick fou cabdal per al progrés de la biologia molecular. Fins i tot es diu sovint que aquesta ciència va néixer l’any 1953, quan es va publicar aquest article. Per què es considera tan important el descobriment de Watson i Crick?
e)Amb tot, han passat els anys i algunes coses en el text ho demostren. Per exemple, les unitats emprades. Quines unitats emprades per Watson i Crick estan actualment en desús? Com ho diríem ara?
f)Fixa’t en la darrera frase del text de Watson i Crick. Què significa?
2. Quants parells de bases té una molècula d’ADN dúplex que té una longitud de 20 mm?
3. En mostres d’ADN aïllades de dues espècies bacterianes diferents, l’espècie 1 i l’espècie 2, l’adenina representa el 32% i el 17%, respectivament, de les bases totals. Tenint en compte aquestes premisses, respon a les preguntes següents:
a)Quines proporcions relatives de les altres bases s’espera que hi hagi a l’espècie 1 i a l’espècie 2? Raona la resposta.
b)Si bé la proporció A+G / T+C és igual a 1, ¿pots dir el mateix de la proporció A+T / G+C? Per què?
4. Tenint en compte que l’anàlisi de l’àcid nucleic d’un virus revela que les bases es troben en la proporció següent: adenina, 21%; uracil, 29%; citosina,
22%; guanina, 28%, digues si el virus en qüestió té un àcid nucleic de filament simple o dúplex i si és un ADN o un ARN.
5. En la il·lustració de sota hi ha representat un tros de cadena d’ADN. Posa-hi el nom i les dimensions de cada part, assenyala els límits dels nucleòtids i comenta’n l’estructura.
6. En la fotografia de la dreta apareixen diversos mitocondris vistos al microscopi electrònic. Observala bé i contesta a les preguntes següents:
a)De la llista de molècules que trobaràs a continuació, digues quines és probable que es trobin a l’interior dels mitocondris i quina funció hi fan: dAMP, FAD, NAD, ATP, CMP, ADN, ARNt, ARNm, ARNr.
b)En el cas de les molècules que no es troben en els mitocondris, digues en quin punt de la cèl·lula es troben i explica’n el perquè.
Esquema
1.El naixement de la genètica
2.El treball de Mendel
3.Genotip i fenotip
4.La genètica i la teoria cromosòmica de l’herència
5.Determinació del sexe
6.Lligament
7.L’expressió dels gens
Els gens controlen l’herència dels caràcters hereditaris.
Durant milers d’anys, la humanitat ha intentat d’esbrinar com es transmeten els caràcters hereditaris i de conèixer-ne les lleis.
Gregor Mendel (1822-1884) va fer el primer pas en ferm.
Amb el temps, s’ha demostrat que l’explicació bastida per Mendel per donar compte dels resultats dels seus experiments és bàsicament correcta, i, tot i que ha resultat ampliable –té excepcions–, la seva formulació de les lleis de l’herència, «lleis de Mendel», constitueix la base de la part més formal o clàssica de la genètica: la genètica clàssica o mendeliana.
Cap dels experiments realitzats fins ara no ha estat portat a terme en una escala prou gran i de manera prou precisa per poder determinar el nombre de les diferents formes sota les quals apareixen els descendents dels híbrids. Cap d’ells no ha servit, tampoc, per classificar amb certesa aquestes formes segons les successives generacions o precisar-ne les relacions estadístiques.
La genètica actual té el seu punt de partida en els treballs de Gregor Mendel, un monjo centreeuropeu que a mitjan segle XIX realitzà uns experiments d’entrecreuament amb pesoleres, els resultats dels quals publicà l’any 1866. Algunes plantes diferien només per un caràcter –monohibridisme–, com ara el color de la flor (blanca o rosada), el color del pèsol (groc o verd), la forma del pèsol (llis o rugós), etc. Altres vegades les plantes es diferenciaven per dos caràcters alhora –dihibridisme– (per exemple, color i forma de la llavor), o per més de dos a la vegada.
Sovint els nens s’assemblen a algun avi o reprodueixen l’aspecte d’un besavi, ja que amb freqüència els pares amaguen en el seu cos nombrosos primordis barrejats de formes ben diverses, els quals, havent-los rebut del seu llinatge, passen als seus descendents. D’aquests primordis treu Venus formes d’aspecte variable i reprodueix les faccions, la veu o els cabells dels seus avantpassats.
LUCRECI, De la natura de les coses (segle I aC)
El Naixement de Venus, de Sandro Botticelli. Fins al segle XIX, abans dels treballs de Gregor Mendel, que suposaren l’inici de la genètica, les lleis de l’herència biològica foren objecte d’especulació.
Mendel usà en els seus encreuaments amb pèsols set parelles de caràcters alternatius que, per autofecundacions repetides, conservà com a línies pures. En conjunt, obtingué (atenent només a diferències en una sola parella de caràcters o monohibridismes) els resultats de la taula de peu de pàgina.
Abans de començar els experiments d’encreuament, Mendel es va assegurar que les seves varietats de pesoleres fossin línies pures (és a dir, genèticament homogènies). Per això va conrear-les durant generacions successives, i va eliminar qualsevol individu que s’apartés del tipus. Habitualment, les flors de pèsols s’autofecunden, de manera que per encreuar dues varietats diferents cal fer un encreuament experimental, retirant, abans que siguin madurs, els estams d’una flor –la qual actuarà com a mare– i empolsinant-ne el pistil amb el pol·len d’una flor de l’altra estirp.
Embolcall gris (flors púrpures)
Embolcall blanc (flors blanques)
Constreta
Totes llises
Totes grogues
Totes púrpures
Totes inflades
Totes verdes
Totes llargues
Totes
Mendel obtingué l’èxit que no assoliren altres hibridadors d’animals o de plantes, tal com s’anomenaven aleshores, en part per la seva perspicàcia i en part pel bon disseny o valor metodològic dels seus experiments, que es pot resumir en tres punts: a) l’enfocament analític (en lloc de perdre’s en el seguiment de l’herència de molts caràcters, Mendel només en va tenir en compte un o pocs més de dos alhora); b) la utilització de línies pures; c) l’anàlisi quantitativa dels resultats d’un encreuament especialment dissenyat.
Durant molts anys –fins a l’inici del desenvolupament de la genètica molecular, a mitjan segle XX–, aquesta mena d’anàlisi d’encreuaments experimentals va ser gairebé l’únic mètode de laboratori en l’estudi de la genètica.
Quan Mendel encreuà una línia pura de pèsols de llavor llisa amb una altra de llavor rugosa, els individus de la primera generació filial o F1 resultaren tots uniformes; en aquest cas, perquè tots s’assemblaven a un dels progenitors: el de llavor llisa. El mateix succeïa, però, amb qualsevol de les altres sis parelles de caràcters que Mendel estudià en el pèsol. Aquest fet, de validesa universal, constitueix la llei de la uniformitat dels híbrids de la F1 (primera llei de Mendel). Mendel denominà dominant el caràcter que preval en l’híbrid i recessiu el que no s’hi manifesta.
De fet, però, la dominància no és un fet universal. Sovint –tal com passa, per exemple, amb el color de la flor de nit (Mirabilis jalapa)–,
Pèsols llisos (a) i pèsols rugosos (b), com els que va utilitzar Mendel en els seus experiments.
Encreuament entre una planta de pèsol de llavors llises i una de llavors rugoses (monohibridisme amb dominància).
Encreuament entre flors de nit de flor vermella i de flor blanca (monohibridisme amb herència intermèdia). En aquest cas, els heterozigots de la F2 presenten flors rosades.
Vermelles RR Blanques rr
Totes les flors de la F1 són roses perquè no domina cap al·lel
Per encreuar diferents varietats de pèsols, cal evitar l’autofecundació i recórrer a encreuaments experimentals.
de pol·len
Vermelles
L’herència dels grups sanguinis AB0 presenta codominància.
es dóna una altra situació, l’herència intermèdia, anomenada així perquè els híbrids presenten un aspecte intermedi. Efectivament, si s’encreuen dues línies pures de Mirabilis jalapa, vermelles i blanques, respectivament, els híbrids resultants presenten un aspecte intermedi: flors de color rosa. Hi ha encara una tercera situació possible, la denominada codominància, caracteritzada pel fet que en l’híbrid es manifesten els dos caràcters alhora. Així, per exemple, les característiques del grup sanguini A i del grup sanguini B s’expressen igualment en les persones que han heretat totes dues característiques (una de cada progenitor).
Així doncs, aquesta primera llei de l’herència postula que tots els híbrids de la primera generació filial (en un encreuament entre línies pures) són uniformes, bé perquè són com un dels progenitors (quan hi ha dominància), bé perquè presenten un aspecte intermedi entre tots dos progenitors (quan hi ha herència intermèdia), o bé perquè els manifesten tots dos alhora (quan hi ha codominància).
Una vegada obtinguda la primera generació filial, Mendel no s’aturà, sinó que deixà que els individus d’aquesta generació s’autofecundessin i n’analitzà la descendència: la segona generació filial o F2. En el cas considerat fins ara (la forma de la llavor del pèsol), s’observa que la proporció de plantes amb llavors llises i rugoses en la F2 és de 3:1. De les de llavor llisa, 1/3 són línies pures, mentre que els altres 2/3 són híbrids i repeteixen els resultats de la F2 en les seves descendències.
En el cas d’herència intermèdia, la segona generació filial està constituïda per plantes amb flors vermelles, flors rosades i flors blanques, en una proporció 1:2:1. Les plantes de flors vermelles i les de flors blanques són línies pures, mentre que les de flors rosades són híbrides i repeteixen en les seves descendències aquestes proporcions 1:2:1. Quan hi ha codominància, la situació és semblant.
Mendel considerà amb molta perspicàcia que els caràcters alternatius estan determinats per factors –actualment, els denominem gens (terme proposat pel genetista danès Wilhelm Johannsen el 1909), i sabem que estan constituïts per ADN i que es troben en els cromosomes–. Els gens es transmeten a través dels gàmetes i cadascun d’ells pot existir en dues formes alternatives (al·lels o al·lelomorfs), per exemple, llis/rugós, vermell/blanc, etc., amb el benentès que cada individu posseeix dos gens, idèntics o no, per a cada caràcter. L’homozigot és l’individu que té dos al·lels idèntics per a un determinat caràcter, i l’heterozigot, el que els té diferents. Per tant, doncs, les línies pures són homozigòtiques, i els híbrids, heterozigòtics.
De la reaparició dels dos caràcters dels progenitors en la F2, Mendel en va deduir la llei de la segregació (segona llei de Mendel): els dos factors (gens) per a cada caràcter no es mesclen ni es fusionen de cap manera, sinó que se segreguen a l’hora de formar-se els gàmetes. Un heterozigot dominant es pot reconèixer encreuant-lo amb un homozigot recessiu. La meitat de la descendència serà també recessiva.
Mendel fou qui va descobrir com es transmeten els factors que determinen els caràcters hereditaris. Anys més tard, aquests factors foren identificats i anomenats gens.
Dels resultats obtinguts per Mendel es desprèn, igualment, la llei de la transmissió independent (tercera llei de Mendel), que postula que els gens per a diferents caràcters s’hereten de manera independent. Així, per exemple, quan es porta a terme, tal com féu Mendel, un dihibridisme (encreuament entre dues varietats de línies pures que difereixen per dos caràcters a la vegada) entre pesoleres de llavors llises i grogues i pesoleres de llavors rugoses i verdes (sent aquests dos últims caràcters recessius, respectivament, respecte als seus parells al·lelomorfs llis i groc), s’obté una F1 on tots els individus, híbrids, són uniformes, ja que repeteixen les característiques del progenitor doble dominant. Per autofecundació de la F1, s’obté una F2 composta per quatre classes d’individus, de llavor llisa i groga, llisa i verda, rugosa i groga i, finalment, rugosa i verda, en una proporció, respectivament, 9:3:3:1.
Mendel, que feia servir línies pures en els seus encreuaments (és a dir, utilitzava línies genèticament homogènies), encreuava pèsols que diferien per pocs caràcters alhora: monohibridisme (un sol caràcter diferent), dihibridisme (dos caràcters diferents), etc.
Nombre de gens (caràcters) diferents
Nombre de gàmetes diferents en la F1
Nombre de genotips diferents en la F2 Nombre de fenotips diferents en la F2 (en cas de dominància completa)
Resultats de l’encreuament de pesoleres de llavor llisa i groga amb pesoleres de llavor rugosa i verda (dihibridisme).
Generació
De manera general, els encreuaments de línies pures que difereixen per n caràcters donen lloc a híbrids (poliheterozigots) de la F1 que produeixen 2n classes de gàmetes diferents. Així, per exemple, en un trihibridisme (amb relació de dominància en els tres casos), els individus de la F1 formaran vuit classes de gàmetes i en la F2 formaran vuit tipus diferents d’individus (fenotips), mentre que el nombre de genotips diferents, tal com mostra la taula de dalt, és de 3n
A diferència de les dues primeres lleis, de validesa general, la tercera llei de Mendel no sempre es compleix. Al contrari, al llarg de la història de la genètica, ben aviat començaren a acumular-se irregularitats i excepcions, perquè per a molts gens sembla que la tendència és heretar-los conjuntament. Tal com veurem més endavant, això és degut a la posició en un mateix cromosoma dels gens que determinen els diferents caràcters.
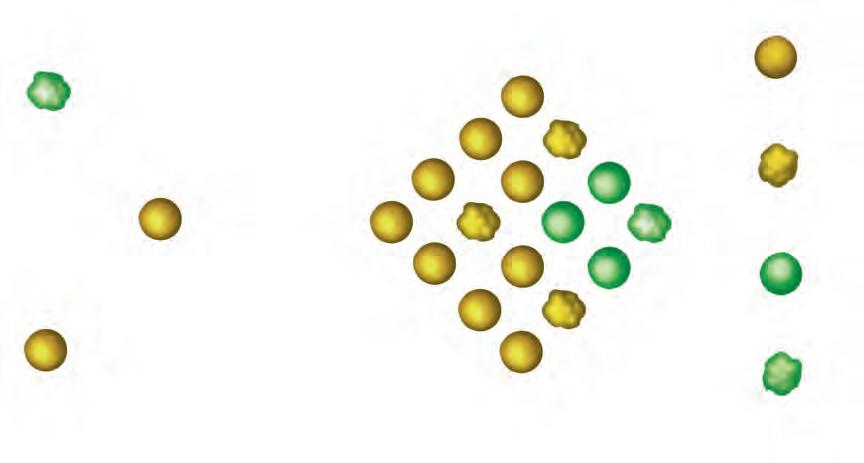
El terme genotip designa tant la constitució genètica d’un individu entesa en un sentit global com la constitució més concreta, pel que fa als gens o als al·lels, per a un caràcter determinat.
D’una manera equivalent, el terme fenotip es refereix tant a l’aspecte global de l’individu com a un tret concret: el color de la llavor, el color de la flor, etc. Tal com hem vist fins ara, el genotip s’expressa en el fenotip en funció de les relacions de dominància dels al·lels. En canvi, per exemple, en un monohibridisme amb herència intermèdia, les proporcions genotípiques i fenotípiques són, en cada cas, 1:2:1; si hi ha dominància, les proporcions fenotípiques són, tal com hem vist, 3:1, però les genotípiques, 1:2:1. Tanmateix, però, l’expressió del genotip en el fenotip no és una qüestió lineal, ja que, de fet, el fenotip és el resultat de la interacció dels factors ambientals amb el genotip en el desenvolupament.
Mendel suposà l’existència de dues variants al·lèliques per a cada caràcter hereditari. De fet, en molts casos, no n’hi ha solament dues, sinó més (3, 4, 5…). El que passa, però, és que en els organismes diploides cada individu només és portador de dues variants (iguals o diferents).
El color del pèl en el conillet d’Índies és un caràcter regit per una sèrie de 4 al·lels (l’estricta realitat és, de fet, una mica més complicada) amb relacions de dominància i necessitat esglaonades.
a) Cèl·lules testiculars en procés de divisió meiòtica a l’interior dels tubs seminífers en secció transversal.
b) Cèl·lules testiculars ampliades en el transcurs de la profase I (zigotè i paquitè).
El nombre de cromosomes és constant per a totes les cèl·lules d’una mateixa espècie biològica, excepte en el cas dels organismes de reproducció sexual. En la major part d’aquestes espècies, tal com hem vist anteriorment, el nombre de cromosomes de les cèl·lules reproductores –els gàmetes– és la meitat del de les altres cèl·lules del cos.
Les cèl·lules amb una dotació de cromosomes senzilla (n) són cèl·lules haploides, i les que tenen dotació doble (2n), diploides. Així, per exemple, el nombre cromosòmic diploide (2n) i haploide (n) de les cèl·lules somàtiques (corporals) i reproductores de l’ésser humà és, respectivament, de 46 i 23. Per a cada parella, un dels cromosomes procedeix d’un progenitor, i l’altre cromosoma procedeix de l’altre progenitor.
La meiosi, un tipus especial de divisió cel·lular que origina cèl·lules filles haploides a partir d’una cèl·lula diploide, impedeix que, en els organismes de reproducció sexual, el nombre de cromosomes es dobli en cada generació (tal com succeiria si es fecundessin gàmetes diploides).
Però la meiosi té altres conseqüències genètiques molt importants: la recombinació entre cromosomes homòlegs i la segregació d’aquests cromosomes. Tots dos processos es realitzen de manera aleatòria.
La cèl·lula que inicia la meiosi té dos jocs de cromosomes, i de cada parell un procedeix del pare i l’altre, de la mare. Tots dos poden tenir informació genètica diferent (l’un pot portar, per exemple, informació per a «ulls blaus» i «grup sanguini A», i l’altre, posem per cas, per a «ulls marrons» i «grup sanguini 0»). Atès que els cromosomes homòlegs s’entrecreuen i estableixen zones de contacte o quiasmes durant la meiosi, les combinacions de gens paterns i materns no es mantenen sempre, perquè si hi ha hagut intercanvi de fragments cromosòmics o recombinació entre els indrets portadors de la informació per al color dels ulls i per al grup sanguini, algunes de les cèl·lules filles poden contenir noves combinacions d’informació; per exemple, ulls blaus i grup 0, o ulls marrons i grup A.
Durant la profase de la primera divisió meiòtica, els cromosomes homòlegs s’aparellen, es formen quiasmes i es produeix l’entrecreuament entre cromàtides i la recombinació genètica. Quan els cromosomes homòlegs se separen, algunes cromàtides han bescanviat segments (en el dibuix només n’han bescanviat un).
Quiasma i entrecreuament de dos segments homòlegs de cromàtides
Separació dels cromosomesCromosomes homòlegs que s’han bescanviat segments de cromàtides
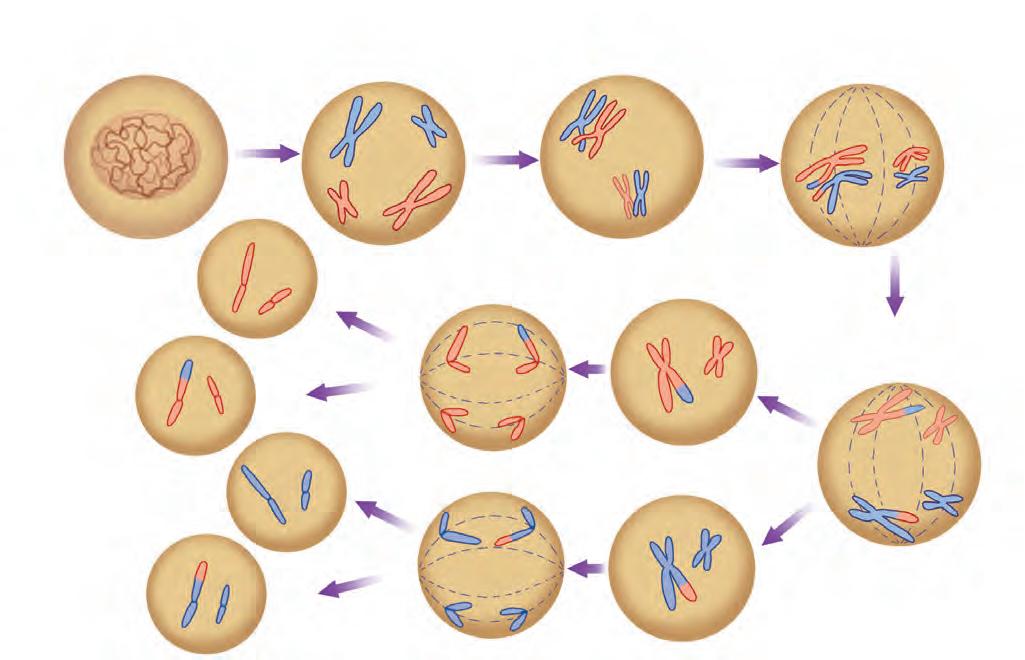
La meiosi, doncs, té unes conseqüències genètiques que es poden resumir de la manera següent:
a) La meiosi fa possible la conservació del nombre de cromosomes, de generació en generació, en els organismes que es reprodueixen sexualment.
b) La meiosi atorga als organismes de reproducció sexual una gran varietat i, per tant, una enorme plasticitat evolutiva, perquè és una font inesgotable de recombinació genètica. Efectivament, només un cromo-
La meiosi redueix a la meitat el nombre de cromosomes, tal com mostra aquesta il·lustració d’una cèl·lula amb 2n = 4 cromosomes.
A partir d’una cèl·lula diploide es formen cèl·lules haploides, amb n cromosomes = 2.
Tres parelles de cromosomes homòlegs
Distribució independent dels homòlegs paterns i materns durant la meiosi
soma de cada parell passa a una o altra cèl·lula filla. La mescla de gens paterns i materns que això comporta és molt gran. A més, l’entrecreuament de material genètic afavoreix la recombinació dels trets hereditaris materns i paterns fins a nivells virtualment il·limitats. Negligint fins i tot aquest efecte multiplicador de l’entrecreuament, la probabilitat que un gàmeta humà rebi tots els cromosomes materns o paterns és de (1/2)22
c) La meiosi és un procés que es troba en la base de la regulació del sexe dels individus en tots els organismes en què la determinació del sexe és cromosòmica. Matern
Gàmetes possibles
Els gàmetes es formen a partir de les cèl·lules precursores durant la meiosi. La distribució independent dels cromosomes d’origen matern i patern fa que els gàmetes continguin informació genètica molt diversa. Per simplificar, el dibuix mostra una cèl·lula amb només 3 parells de cromosomes i sense tenir en compte els efectes de la recombinació genètica.
Genètica i probabilitat
Els resultats observats en l’estudi d’un cas real o en un experiment rarament concorden amb els resultats esperats, ja que les probabilitats genètiques són conseqüència d’esdeveniments casuals durant la formació dels gàmetes i la seva unió a l’atzar. Els resultats de les mostres petites sovint es desvien més de les proporcions esperades que quan la població estudiada és més gran.
En tirar una moneda enlaire, hi ha la mateixa probabilitat (1/2) que surti cara o creu. Si la tirem dues vegades, la probabilitat és la mateixa en cada cas (el resultat de la segona vegada no està influït pel de la primera), però la probabilitat que totes dues vegades surti cara és el producte de la probabilitat que surti la primera vegada i també la segona (1/2 × 1/2 = 1/4). Aquesta és una regla general de la teoria de les probabilitats que podem enunciar així: la probabilitat combinada que es produeixin dos esdeveniments independents amb probabilitat p i q, respectivament, és el producte de probabilitats, pq. En l’exemple de la moneda, la probabilitat que surti cara totes dues vegades és (1/2) 2
Tanmateix, si ens demanem quina és la probabilitat que en llançar dues vegades la moneda surti una vegada cara i l’altra creu, aleshores hem de reconèixer que és de 2pq, perquè hi ha dues possibilitats: que surti cara la primera i creu la segona o viceversa, i en tots dos casos es compleix la condició expressada, és a dir, una vegada cara i una vegada creu. Això significa que quan existeixen possibilitats alternatives per complir les condicions d’un enunciat, la probabilitat total és la suma o addició de les probabilitats individuals.
L’aplicació i el desenvolupament lògic d’aquestes regles demostra que, de manera general, quan hi ha dos esdeveniments independents i alternatius, la
probabilitat de les diferents situacions, si fem dues provatures, serà un dels termes del desenvolupament del binomi: (p + q)2 = p2 + 2pq + q2, on p i q són les probabilitats d’un esdeveniment i l’altre (cara i creu, en el nostre exemple), i, en general, del binomi (p + q)n si n és el nombre de casos o proves.
Així, per exemple, ens podem preguntar: quina és la probabilitat que dels tres fills d’una parella d’ulls foscos però tots dos heterozigòtics per al caràcter ulls blaus (recessiu) dos tinguin els ulls blaus i un tercer ulls foscos? La resposta és el terme 3pq2 del desenvolupament del binomi (p + q)3, on p (és a dir, probabilitat de tenir un fill d’ulls foscos) és 0,75, i q (és a dir, probabilitat de tenir un fill d’ulls blaus) és 0,25. Per tant, 3 × 0,75 × (0,25)2 = 0,141 (és a dir, del 14,1%).
La notació genètica
Hi ha diverses formes de representar els gens i els seus al·lels. Per exemple, si només es coneixen dos al·lels d’un gen, es designa l’al·lel dominant amb una lletra majúscula i l’al·lel recessiu amb la corresponent minúscula (sovint la lletra emprada és la inicial del caràcter rar o mutant: en el cas dels pèsols de Mendel grocs i verds usaríem V per a l’al·lel groc i v per al verd).
També s’utilitza una altra notació, vàlida també en tots aquells casos en què es coneixen més de dos al·lels per locus (posició que ocupa un gen en el cromosoma), segons la qual s’utilitza una lletra (o grup de lletres) minúscula per designar el gen, i els diferents al·lels es distingeixen mitjançant exponents. L’al·lel normal (dit també tipus salvatge o silvestre), que sovint és l’al·lel dominant d’una sèrie d’al·lels múltiples, es designa amb l’exponent + o simplement amb el signe +, i aleshores el gen s’identifica per l’al·lel recessiu. Sovint, la lletra (o lletres) utilitzada és la inicial del caràcter mutant o del fenotip recessiu en una sèrie múltiple. Així, els al·lels w+ , wa i w són els tres termes d’una sèrie d’al·lels localitzats en el cromosoma X de la mosca del vinagre (Drosophila melanogaster) amb relacions de dominància w+ > wa > w, i causants del color dels ulls en aquest insecte: vermell, ataronjat i blanc, respectivament (de l’anglès white, que vol dir ‘blanc’, mentre que el signe > indica dominància). No és gaire freqüent que el fenotip mutant sigui dominant. En aquest cas (tal com passa, per exemple, amb la forma dels ulls bar de la drosòfila), s’utilitza la inicial majúscula per designar-lo; en l’exemple esmentat, B i B+ són els símbols per designar el gen mutant Bar i el seu al·lel normal, respectivament.
Quan es consideren diversos gens, s’escriuen seguits tots els que es troben en el mateix cromosoma, i després d’una barra tots els situats en el cromosoma homòleg; després d’una coma, s’escriuen de la mateixa manera els d’un segon cromosoma i així successivament. Així, per exemple, y wa/y+ w, se/se+ indica no sols que els gens y (yellow) i w (white) són del mateix cromosoma, diferent del de se (sepia), sinó també la disposició relativa en cada cromosoma homòleg dels diferents al·lels d’aquest triple heterozigot.
Un arbre genealògic és una representació gràfica de la distribució d’un determinat caràcter en un conjunt familiar.
Un cercle representa un individu femení, i un quadrat, un de masculí. Si es desconeix el sexe de l’individu, s’utilitza un rombe. Els individus que presenten el caràcter estudiat s’indiquen mitjançant un senyal o un color diferent.
Cada filera horitzontal representa una generació: com més avall és la filera, més recent és la generació. L’ordre de les generacions s’indica mitjançant xifres romanes. Dins de cada generació, els individus es numeren amb xifres aràbigues, des del més vell (a l’esquerra) fins al més jove (a la dreta).
Una línia d’encreuament, és a dir, una línia horitzontal que connecta directament un individu $ amb un de %, representa un encreuament entre ells. La descendència d’aquest encreuament, que òbviament es trobarà en la generació següent, es representa connectada mitjançant una línia vertical que surt des de la línia d’encreuament anterior. En el cas dels bessons, es fan sortir d’una mateixa línia.
Generació I II
Els arbres genealògics 21


1 23456
9.1. Quines foren les claus dels bons resultats de Mendel?
9.2. En encreuar un conillet d’Índies negre amb un d’albí, s’obtingueren 12 descendents negres. En canvi, en un segon encreuament d’un conill negre i un d’albí, s’obtingueren 6 descendents negres i 5 d’albins. Quins són els genotips més probables dels progenitors i de la descendència dels dos encreuaments?
9.3. En el pollastre, la cresta en roseta és dominant sobre la cresta senzilla. Com podria esbrinar un criador de pollastres si les seves aus amb cresta en roseta són homozigòtiques o heterozigòtiques?
9.4. Dues rates de laboratori negres van ser encreuades amb un mascle bru. La primera va parir, en diferents ventrades, 30 rates negres, mentre que la segona va donar un total de 13 rates negres i 10 de brunes. Com s’hereta el color del pèl en les rates? Quins són els genotips dels individus dels dos encreuaments?
9.5. En el pèsol, el caràcter «color de la llavor» és determinat per un gen amb dos al·lels; l’al·lel V determina color groc i és dominant respecte de l’al·lel v, que determina color verd. El caràcter «forma de la llavor» és determinat per un altre gen independent de l’anterior: l’allel R determina llavor llisa i és dominant sobre l’al·lel r, que determina llavor rugosa.
a) S’encreuen dues varietats pures, una de llavor groga i una altra de llavor verda. En la F2 s’obtenen 556 llavors. Quantes llavors grogues esperaràs obtenir? Per què?
b) S’encreuen dues varietats pures, una de llavor groga i llisa i l’altra de llavor verda i rugosa. En la F2 s’obtenen 3584 llavors. Quantes llavors verdes i rugoses esperaràs obtenir? I quantes de verdes i llises? Per què?
c) Les plantes de la F1 anterior s’encreuen amb la varietat pura de llavors verdes i rugoses. D’aquest encreuament s’obtenen 852 llavors. Quantes llavors grogues i llises esperaràs obtenir? Per què?
9.6. Suposa que en una espècie de plantes es fa l’encreuament següent: AARR × aaBB, on l’al·lel A domina sobre a, però R i B són els dos al·lels d’un segon gen, independent del primer, que presenten herència intermèdia. Digues:
a)Quantes classes fenotípiques es poden esperar en la F2?
b)Quina probabilitat hi ha d’obtenir un individu de genotip aaBB en la F2?
c)Quina proporció d’homozigots es pot esperar per als dos gens en la F2?
9.7. Les característiques fenotípiques dels grans d’una panotxa de blat de moro no depenen del genotip de la planta mare, sinó que són l’expressió dels gens de les diferents llavors. És a dir, una panotxa constitueix un conjunt d’individus de la generació següent a la de la planta que la porta. Algunes de les característiques genètiques d’aquestes llavors són el color (púrpura o groc) i el caràcter (midonós o dolç) de l’endosperma.
La panotxa de la fotografia fou collida d’una planta de la F1, resultat de l’encreuament entre dues línies pures. S’hi han comptat 246 llavors amb els caràcters púrpura i midonós, 84 púrpura i dolç, 79 groc i midonós, i 27 groc i dolç.
a) Formula una hipòtesi que permeti explicar aquests resultats i l’herència d’aquests caràcters.
b) Com ho faries per comprovar la idoneïtat de la hipòtesi formulada?
9.8. Mendel va encreuar una línia pura de pesoleres de flors porpres amb una altra línia pura de pesoleres de flors blanques. Per altra banda, també va encreuar una línia pura de tiges curtes amb una altra de tiges llargues. A la pàgina 265 trobaràs els resultats que va obtenir. Amb una notació genètica adequada, escriu tots els genotips, fins a la F2, d’ambdós encreuaments.
9.9. Totes les cèl·lules i tots els organismes, ¿tenen dos al·lels per a cada caràcter hereditari?
9.10. Si considerem una espècie animal amb cinc parells de cromosomes, digues quina proporció de gàmetes d’aquest animal tindran tots els cromosomes d’origen patern.
9.11. Durant la meiosi, només un cromosoma de cada parell passa a una o altra cèl·lula filla. Prescindint de l’entrecreuament i la recombinació que té lloc entre els homòlegs, digues quina és la probabilitat que en l’espècie humana un gàmeta rebi tots els cromosomes materns o paterns.
9.12. En una determinada espècie animal, el caràcter «llavi leporí» hereditari és determinat per un gen autosòmic. Un mascle i una femella d’aquesta espècie, tots dos de llavi leporí, han tingut tres fills: dos de llavi leporí i un de llavi normal.
a) El llavi leporí, és un caràcter dominant o recessiu? Per què?
b) Quin és el genotip de cadascun dels progenitors?
c) Quina és la probabilitat que, si aquesta mateixa parella té tres fills més, tots tres tinguin el llavi leporí?
d) Quina és la probabilitat que tots tres tinguin el llavi normal?
Cromosomes humans durant la metafase mitòtica (placa equatorial) vistos a través del microscopi òptic.
9.13. Explica què són, en la teoria de la probabilitat, esdeveniments independents i esdeveniments alternatius, i digues què és la probabilitat simple i la probabilitat combinada.
9.14. On es pot esperar més variabilitat genètica, en la descendència d’un organisme que es reprodueix asexualment o en un organisme que ho fa sexualment? Per què? Quina és la fórmula general que expressa el nombre de diferents tipus de combinacions cromosòmiques que es poden donar en els gàmetes d’un organisme amb n parells de cromosomes?
9.15. Quina proporció de parelles d’individus no albins però amb un primer fill albí poden esperar de tenir un segon fill que no sigui albí?
Quan, al final del segle XIX, el perfeccionament dels microscopis va portar al descobriment i la interpretació de la mitosi i la meiosi, ningú no fou capaç de veure-hi implicacions hereditàries. Ara bé, els treballs de Mendel foren descoberts l’any 1900 i ben poc després, l’any 1902, Walter S. Sutton, als Estats Units, i Theodor Boveri, a Alemanya, van comprendre la relació existent entre tots dos camps i suggeriren la teoria cromosòmica de l’herència, és a dir, que els «factors hereditaris», que ben aviat passaren a anomenar-se gens, estan continguts en els cromosomes. Gairebé al mateix temps, el 1905, el britànic William Bateson havia proposat el terme genètica per referir-se a l’estudi de l’herència biològica.
D’una manera admirable, la teoria cromosòmica de l’herència, que va ser desenvolupada, entre altres, pel nord-americà Thomas Hunt Morgan, explica, entre altres coses, l’existència en cada individu de dos al·lels per a cada caràcter (en correlació amb l’existència de parells de cromosomes homòlegs) i la segregació dels al·lels durant la formació dels gàmetes (per la segregació dels cromosomes homòlegs en el transcurs de la meiosi).
Una vegada acceptat el fet que els gens ocupen posicions determinades en els cromosomes (locus), es va comprendre per què alguns gens s’hereten de manera independent (si estan situats en cromosomes no homòlegs), mentre que per a d’altres, situats en el mateix cromosoma, la tendència és heretar-los conjuntament, desmentint la universalitat de la tercera llei de Mendel. També ben aviat es descobriren i s’interpretaren altres anomalies mendelianes, com ara l’herència lligada al sexe.
El mateix any que l’embriòleg alemany Oscar Hertwig (1849-1922) realitzava les seves memorables investigacions sobre la fecundació de l’ou de l’eriçó de mar, un botànic polonès establert a Alemanya, Eduard Strasburger (18441912), estudiava profundament el nucli de les cèl·lules vegetals.
Aquest darrer va descriure amb molta sagacitat la divisió (o mitosi) de la cèl·lula i, particularment, la divisió del nucli en dos nuclis fills. Mostrà que aquest fenomen va sempre acompanyat, en el si del nucli, d’algunes partícules que són fàcils d’acolorir, cadascuna de les quals es divideix en dues. Les observacions de Strasburger foren ben aviat complementades pel seu col·laborador Walther Flemming (1843-1915).
Aquest darrer, en examinar el nucli de les larves d’amfibis, estengué al regne animal els resultats de Strasburger.
Fou Flemming qui designà amb el nom de cromatina la substància que integra aquelles partícules del nucli fàcils de tenyir, i que demostrà, el 1880, que en produir-se la divisió cel·lular les partícules es divideixen en sentit longitudinal. L’atenció dels biòlegs se centrà cada cop més en aquestes partícules, que Heinrich Waldeyer (1836-1921) designà, el 1888, amb el nom de cromosomes.
Un citòleg belga, Eduard van Beneden (1846-1910), establí, amb una sèrie d’admirables investigacions portades a terme entre els anys 1883 i 1887, que el nombre dels cromosomes és idèntic en el nucli de l’òvul i en el de l’espermatozoide. Realitzà les seves observacions sobre un cuc de la classe dels nematodes, l’ascàride del cavall o Ascaris megalocephala, el qual, pel nombre molt petit dels seus cromosomes, era particularment apte per a la numeració cromosòmica.
Van Beneden féu una altra constatació cabdal: observà que el nucli de les cèl·lules reproductores madures conté dues vegades menys cromosomes que el nucli de les cèl·lules germinals de les quals neixen. El 1887, el biòleg alemany Theodor Boveri (1862-1915) confirmà aquest important descobriment.
Després de les revelacions d’Oscar Hertwig sobre el comportament dels nuclis en l’acte de la fecundació, entre els biòlegs prengué cos de manera natural la idea que el nucli de la cèl·lula representa el lloc on es contenen les propietats hereditàries. La idea arrelà definitivament amb la descoberta dels cromosomes, òrgans essencials del nucli. Semblava lògic pensar que aquests òrgans, de nombre constant en una mateixa espècie i de nombre equivalent en la cèl·lula mascle, posseïen totes les qualitats requerides per tenir un paper preponderant en els fenòmens de l’herència. El futur havia de demostrar l’exactitud d’aquesta intuïció.
JEAN ROSTAND, Introducció a la història de la biologia (adaptació)
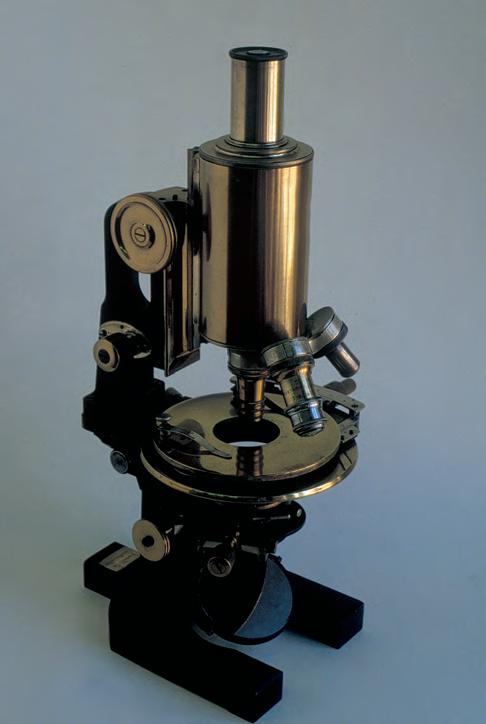
a) Drosòfila $ normal, tipus salvatge, d’ulls vermells.
b) Drosòfila $ mutant d’ulls blancs (white).
Al principi del segle XX, en el seu laboratori dels Estats Units, Thomas Hunt Morgan estudiava la genètica de la mosca del vinagre Drosophila melanogaster. Va descobrir que el resultat de l’encreuament entre mosques d’ulls vermells (tipus salvatge) i mosques mutants (és a dir, genèticament diferents del tipus salvatge) d’ulls blancs, s’allunya de les proporcions mendelianes típiques. En efecte, quan l’encreuament s’efectua entre una femella homozigòtica d’ulls vermells amb un mascle de línia pura, d’ulls blancs, la F1 és tota uniforme d’ulls vermells i la F2 presenta una proporció fenotípica de 3/4 de mosques d’ulls vermells i 1/4 de mosques d’ulls blancs, però amb una distribució particular entre els sexes: mentre que totes les femelles tenen els ulls vermells, la meitat dels mascles els tenen vermells i l’altra meitat, blancs.
Herència lligada al sexe.
a) Resultat de l’encreuament entre una femella d’ulls vermells i un mascle d’ulls blancs.
b) Resultat d’un encreuament recíproc: femella d’ulls blancs i mascle d’ulls vermells.
En canvi, el resultat de l’encreuament recíproc (femella d’ulls blancs amb mascle d’ulls vermells) és diferent. En aquest cas, la F1 no és homogènia, sinó que tots els mascles són d’ulls blancs i totes les femelles, d’ulls vermells. La F2 presenta un 50% de mosques d’ulls blancs i un 50% de mosques d’ulls vermells, proporcions que es mantenen
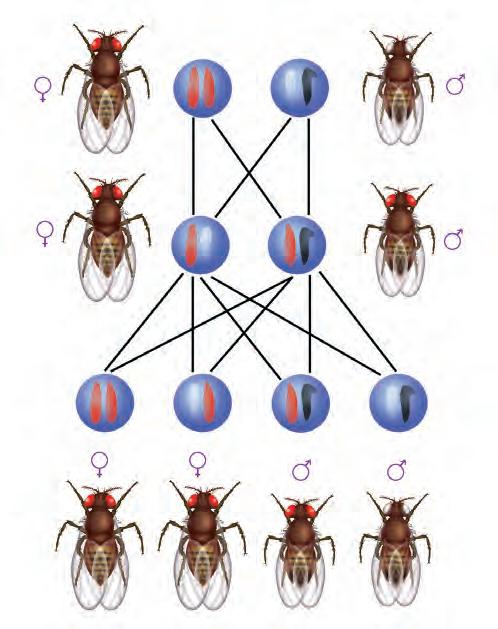
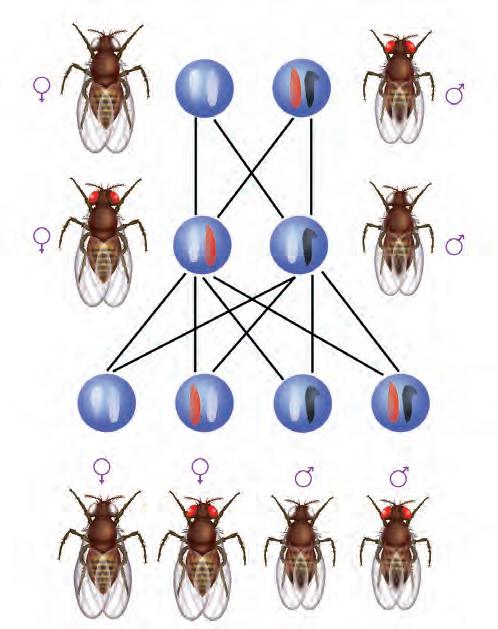
en cada sexe (1/4 de femelles d’ulls vermells, 1/4 de femelles d’ulls blancs, 1/4 de mascles d’ulls vermells i 1/4 de mascles d’ulls blancs, en total).
Morgan va denominar aquest tipus d’herència lligada al sexe, perquè, tal com ell explicà i tal com es desprèn de la il·lustració de la pàgina anterior, és possible interpretar-la si se suposa, d’una banda, que el gen en qüestió es troba en el cromosoma X, i de l’altra, que el cromosoma Y no conté informació per al caràcter. Es coneixen molts gens lligats al sexe en la major part de les espècies. En aquests casos, els mascles porten només un al·lel per a aquests caràcters: no són ni homozigots ni heterozigots, sinó hemizigots. Dos dels trets més aparents d’aquesta mena d’herència són: en primer lloc, el seu caràcter «encreuat» (sovint el caràcter canvia de sexe d’una generació a l’altra perquè els mascles reben el cromosoma X de la mare i les femelles en reben un de cada progenitor); i, en segon lloc, atès que la major part de mutants són recessius, la raresa amb què les femelles, en comparació dels mascles, exhibeixen el fenotip mutant, tot i que en poden ser «portadores» (heterozigòtiques) i transmetre’l, en aquest cas, al 50% dels seus fills mascles.
L’anestèsia amb èter és un procediment comú per a la manipulació, al laboratori de les drosòfiles.
Al cromosoma Y li falta el duplicat de la major part de gens presents en el cromosoma X.
No obstant això, no està completament desproveït d’informació genètica. D’una banda, hi ha gens que només són presents en el cromosoma Y i que, per tant, es transmeten i manifesten només en els mascles, de manera necessària. És el que s’anomena herència holàndrica o herència lligada al cromosoma Y. D’altra banda, en el cromosoma Y també hi ha gens que tenen el seu homòleg en el cromosomaX (en el fragment homòleg de tots dos cromosomes). En aquest cas, tots dos sexes presenten dos al·lels per al caràcter, però atesa la transmissió del cromosoma Y, els resultats dels encreuaments experimentals són atípics i diferents entre tots dos recíprocs.
En general, el cromosoma Y és necessari en els animals per a la masculinitat o, si més no, per a la fertilitat, tot i que hi ha grans diferències entre les espècies, i sovint la plena expressió del sexe depèn de l’equilibri de la dosi d’autosomes i de cromosomes Y.
A vegades, el sexe d’un individu depèn d’un precís equilibri metabòlic. En l’espècie humana pot succeir, encara que molt rarament, que un individu no tingui el receptor intracel·lular de l’hormona testosterona i desenvolupar-se com a femella malgrat tenir una dotació cromosòmica XY.
El cromosoma X de l’espècie humana té probablement més de 3500 gens. En canvi, el cromosoma Y amb prou feines en té 30. Entre aquesta trentena de gens hi ha els gens de la masculinitat, com ara el gen SRY (sigles angleses de Sex determination Region of Y). Aquest gen fou identificat l’any 1990 en el braç més curt del cromosoma Y i és el gen que determina, entre la cinquena i la vuitena setmana de gestació, la deferenciació dels testicles i la cascada d’esdeveniments que determinen la masculinització de l’organisme.
Tal com va dir, l’any 1961, el genetista Seymour Benzer, «en l’estudi de la genètica tot està supeditat a l’elecció de l’organisme adequat». Des que Thomas Hunt Morgan i el seu deixeble Calvin Bridges van introduir, cap a l’any 1910, l’ús als laboratoris de la mosca del vinagre (Drosophila melanogaster), per la rapidesa amb què cria i la facilitat de cultivar-la, alguns organismes –cada vegada més simples– emprats pels genetistes han acabat acaparant l’atenció dels biòlegs a causa de les seves reduïdes dimensions, la simplicitat del seu material genètic, la seva fecunditat o la facilitat i l’economia en el seu ús. A hores d’ara, aquests éssers són els organismes amb genoma més ben conegut. De fet, molts dels coneixements actuals de la biologia –i molt del que sabem de nosaltres mateixos–, els biòlegs els han après d’aquests petits éssers, començant per les rates i els ratolins de laboratori.
Entre aquests organismes hi ha una planta, de la família de la col, l’Arabidopsis thaliana, molt usada en enginyeria genètica per la seva menudesa, la facilitat de cultiu al laboratori i la celeritat del seu cicle biològic. El Caenorhabditis elegans presenta uns avantatges semblants; és un petit cuc nematode, gairebé transparent, de no més d’un mil·límetre de llargada, que es cultiva amb facilitat i es reprodueix en només tres dies.
Entre els bacteris, molt usats també en l’experimentació en genètica molecular, el més conegut i el més estudiat és l’ Escherichia coli, un enterobacteri, és a dir, un bacteri de la flora intestinal. Més simples que els bacteris, alguns virus –com ara els fags lambda, T2, φX174, etc.– també són molt estudiats, des que es va disposar de tècniques adequades per al cultiu cel·lular de virus.
Al·lel o al·lelomorf. Cadascuna de les varietats existents en la població per a un mateix gen.
Autosoma. Qualsevol cromosoma no relacionat directament amb la determinació del sexe (diferent de X o de Y).
Codominància. Situació hereditària caracteritzada pel fet que en l’heterozigot es manifesten, completament, els dos al·lels.
Dihibridisme. Encreuament experimental en què els progenitors difereixen per dos caràcters alhora.
Diploide. Cèl·lula (o organisme) amb 2 n cromosomes, és a dir, amb n parelles de cromosomes homòlegs (i, per tant, amb dos al·lels, iguals o diferents, per a un mateix caràcter).
Dominància. Situació hereditària caracteritzada pel fet que, en l’heterozigot, un al·lel, dit dominant, es manifesta alhora que emmascara o impedeix la manifestació fenotípica de l’altre, el recessiu.
Encreuament recíproc. Encreuament recíproc respecte a un altre, en el qual els caràcters considerats es troben en progenitors de sexe oposat.
Encreuament retrògrad. Encreuament entre els % de la descendència d’un encreuament anterior i les seves mares, o, també, entre les femelles filles d’aquell encreuament i els seus % progenitors.
Fenotip. Aspecte extern (morfològic, bioquímic, etc.) que presenta un individu d’un determinat genotip. El terme tant és aplicable d’una manera global (aspecte global) com d’una manera concreta en relació amb un caràcter concret. El fenotip és el resultat de la interacció genotip-ambient.
Gen. Fragment d’ADN. En sentit clàssic, unitat hereditària. Cadascuna de les unitats del material genètic que determinen l’herència i l’expressió d’un caràcter. (Hi ha també, però, gens reguladors, que no determinen un caràcter, sinó que regulen l’expressió d’altres gens, anomenats estructurals.)
Genètica. Branca de la biologia que estudia l’herència biològica.
Genotip. Constitució hereditària d’un individu. Tant és aplicable globalment com de manera concreta a la constitució hereditària en un determinat locus o per a un determinat caràcter.
Haploide. Cèl·lula (o organisme) amb n cromosomes, que té només un únic representant de cadascuna de les parelles d’homòlegs dels cromosomes presents en les cèl·lules diploides de la mateixa espècie (és portador d’un sol al·lel per a un caràcter donat).
Hemizigot. En l’herència lligada al sexe, individus (els %, en l’ésser humà i en la major part d’espècies) que només tenen un al·lel (gen) per al caràcter en qüestió.
Herència holàndrica. Herència d’un caràcter determinat per un gen situat en el cromosoma Y.
Herència intermèdia. Situació hereditària caracteritzada pel fet que l’heterozigot presenta un fenotip híbrid, intermedi entre els dos homozigots.
Herència lligada al sexe. Herència d’un caràcter determinat per un gen situat en el cromosoma X.
Heterocromosoma. Cromosoma sexual, X o Y, que determina el sexe de l’individu.
Heterozigot. Individu portador de dos al·lels diferents per a un caràcter donat.
Homozigot. Individu portador de dues còpies idèntiques del mateix gen. L’homozigot produeix un sol tipus de gàmetes, mentre que l’heterozigot en produeix de dos tipus.
Híbrid. Individu resultant de l’encreuament de dos progenitors diferents.
Línia pura. Organismes genèticament homogenis (homozigots), si més no per a un caràcter donat.
Lleis de Mendel. Regles bàsiques de la transmissió dels caràcters hereditaris, descobertes per Mendel.
Locus. Localització cromosòmica d’un gen o també posició determinada que un gen ocupa en un cromosoma.
Meiosi. Divisió reduccional, lligada a la reproducció sexual, en què, a partir d’una cèl·lula diploide, es formen quatre cèl·lules filles haploides i durant la qual es produeix la recombinació del material hereditari.
Monohibridisme. Encreuament experimental en què els progenitors difereixen tan sols en un caràcter.
Mutació. Alteració d’un fragment del material hereditari com a conseqüència d’un canvi en el material genètic d’una cèl·lula.
En el seu desenvolupament històric, els primers coneixements de la genètica es relacionaven amb les proporcions fenotípiques i genotípiques de la descendència que s’observen en els encreuaments.
Les lleis que determinen aquestes proporcions constitueixen la genètica clàssica, mendeliana o qualitativa. Després vingué, a poc a poc, el coneixement relatiu a la genètica molecular, és a dir, a la naturalesa química del material hereditari, a l’ADN i a les transformacions que aquest pot experimentar.
Mutant. Individu que és portador d’una mutació. Primera i segona generació filials. Generacions resultants d’un encreuament experimental. També s’anomenen F1 i F2 Proporcions o freqüències fenotípiques. En un encreuament, repartició quantitativa dels diferents fenotips entre els individus de les generacions filials. Proporcions o freqüències genotípiques. En un encreuament, repartició quantitativa dels diferents genotips entre els individus de les generacions filials. Recessivitat. Qualitat de recessiu. Allò oposat a dominant.


9.16. Observa l’arbre genealògic de l’esquerra, en el qual els símbols blaus representen individus afectats. Quins descendents demostren que no es pot tractar del cas d’un gen recessiu lligat al sexe: l’1 i el 2? El 4? El 5? El 2 i el 4?
9.17. Observaels tres arbres genealògics de sota (A, B i C) i indica, per a cada un d’ells, si es tracta d’un cas d’herència d’un gen autosòmic recessiu, d’un gen autosòmic dominant, d’un gen recessiu lligat al sexe, d’un gen dominant lligat al sexe o d’un gen holàndric. Raona la resposta.


9.18. Una $ d’una línia pura de Drosophila melanogaster d’ulls blancs (un caràcter recessiu lligat al sexe) s’encreua amb un % d’ulls vermells.
Posteriorment, s’encreua una femella de la F1 d’aquell encreuament amb un % d’ulls vermells.
a)Quins seran els fenotips de la F1 i de la descendència de la F1?
b)Utilitzant una notació adequada, fes un esquema d’aquests encreuaments i escriu el genotip de tots els individus.
9.19. Suposant que els mascles d’una parella de gats domèstics poden ser grocs o negres i les femelles, grogues, negres o jaspiades, respon les preguntes següents:
a)Com poden explicar-se aquests resultats d’acord amb un model d’herència lligada al sexe?
b)Utilitzant una notació adequada, escriu els genotips i els fenotips d’un encreuament entre una femella groga i un mascle negre. Quines seran les proporcions entre la descendència?
c)Un determinat encreuament produeix: 1/4 de $ jaspiades, 1/4 de $ negres, 1/4 de % grocs i 1/4 de % negres. De quin color eren els progenitors?
d)Un altre encreuament produeix: 1/4 de $ jaspiades, 1/4 de $ grogues, 1/4 de % negres i 1/4 de % grocs. De quin color eren els progenitors?
9.20. En l’encreuament entre femelles d’una línia pura de drosòfiles d’ulls vermells (tipus salvatge) i mascles d’una altra línia pura d’ulls de color sèpia, s’obtingué una F1 uniforme de mosques d’ulls vermells i en la F2 es van obtenir 304 femelles, totes d’ulls vermells, i 315 mascles, dels quals 161 d’ulls sèpia i 154 d’ulls vermells.
a)Quin tipus d’herència per als ulls de color sèpia es desprèn d’aquests resultats? Per què?
b)Escull una notació genètica adequada per representar aquests caràcters i escriu els genotips de tots els individus d’aquest encreuament (generació parental, F1 i F2).
c)Quins resultats obtindries de l’encreuament retrògrad entre els mascles d’ulls de color sèpia de la F2 i les femelles de la F1?
9.21. En la drosòfila, el caràcter «vestigial» (ales rudimentàries) és recessiu i està determinat per un gen autosòmic. El color blanc està determinat per un al·lel lligat al sexe, recessiu respecte del seu al·lel normal que determina els ulls vermells. Si s’encreua una femella homozigòtica d’ales normals i ulls blancs amb un mascle d’ales vestigials i ulls vermells, quin serà el fenotip de les mosques de la F1? ¿I el de la descendència dels encreuaments entre les mosques de la F1 amb cada progenitor respectiu?
9.22. Ebony i white són dos caràcters recessius en la drosòfila situats en cromosomes diferents. Quines F1 i F2 cal esperar de l’encreuament d’una femella homozigòtica white i ebony amb un mascle normal?
Entre els gats, habitualment només les femelles presenten un pelatge jaspiat.
A 25 °C les drosòfiles poden completar el seu cicle biològic, des de l’ou fins a la crisàlide, en 15 dies. En un petit flascó d’un vuitè de litre se’n poden criar alguns centenars amb unes farinetes de blat de moro, econòmiques i senzilles de preparar. Això ha fet de la Drosophila melanogaster un dels organismes més utilitzats per a l’estudi de la genètica mendeliana. RECORDA
La determinació del sexe no és un mecanisme cromosòmic per a totes les espècies. En alguns organismes és més aviat el resultat de processos fisiològics. En alguns peixos d’aquari, com ara en els comuns platis i molis, és freqüent que els individus siguin primer femelles i, posteriorment, mascles.
9.23. El mutant recessiu bobbed de la drosòfila, que determina un fenotip amb pèls més curts i prims que els de les mosques normals, es troba situat a la regió del cromosoma X, homòloga amb el cromosoma Y (i, per tant, també és present en aquest últim). Quina descendència tindrà una mosca femella homozigòtica recessiva encreuada amb un mascle heterozigòtic que porta el mutant en el cromosoma X? I si el porta en el cromosoma Y?
En la major part d’organismes superiors, la determinació del sexe és una qüestió genètica. Tal com hem estudiat, l’ésser humà, la drosòfila i la gran majoria d’animals vertebrats i invertebrats, tenen un parell de cromosomes, els cromosomes sexuals, iguals en les femelles (XX), i diferents en els mascles (XY). Així, mentre que les femelles produeixen per meiosi uns gàmetes que són tots portadors d’un cromosoma X (són el sexe homogamètic), els mascles produeixen dos tipus d’espermatozoides (sexe heterogamètic), els uns portadors d’un cromosoma X, que en fecundar l’òvul originaran individus del sexe femení, i els altres, d’un cromosoma Y, que en fecundar l’òvul originaran mascles.
L’herència del sexe.
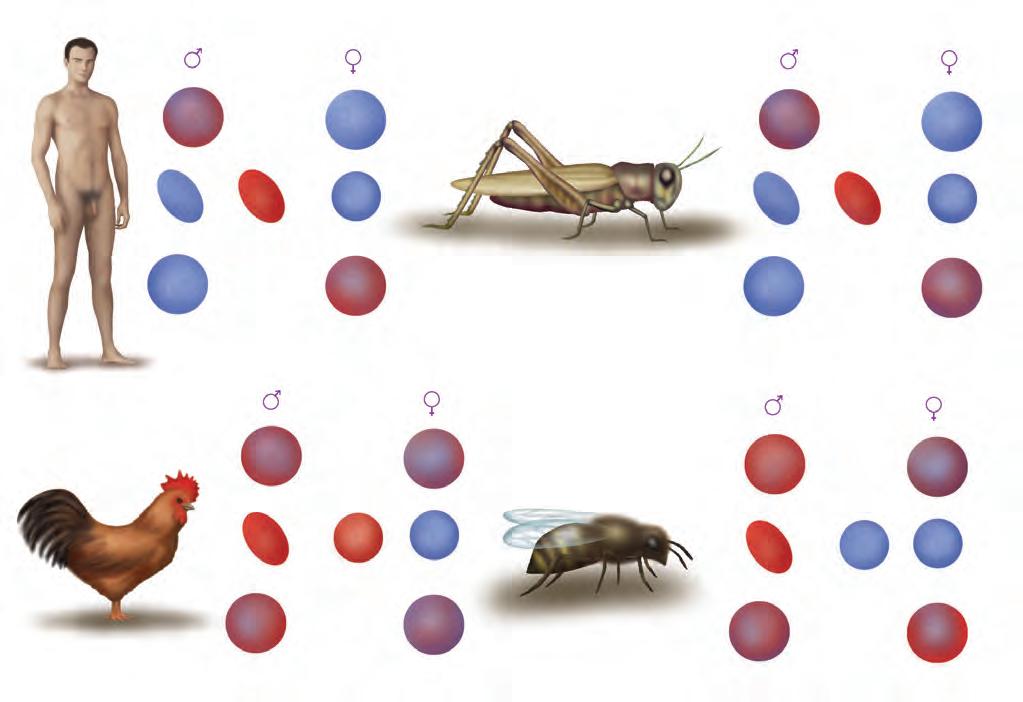
Hi ha organismes, com ara alguns vertebrats inferiors i els insectes ortòpters, que tenen un sistema cromosòmic de determinació del sexe que suposa una petita variant respecte a l’anterior: les femelles són XX, mentre que els mascles només tenen un cromosoma X, són X0.
Un tercer tipus, denominat ZW, propi de papallones i d’aus, és l’invers a l’estudiat en primer lloc: el sexe heterogamètic és el femení (ZW) i l’homogamètic, el masculí (ZZ). Cal assenyalar que, en aquests organismes, l’herència dels caràcters lligats al sexe segueix el mateix model, però invertit respecte als sexes (les femelles són, en aquest cas, les hemizigòtiques).
Una determinació genètica del sexe que no es basa en un parell de cromosomes sexuals és la diplohaploide, pròpia de formigues i d’abelles. En aquest cas, els mascles són haploides –s’originen a partir d’òvuls no fecundats– i les femelles, diploides. La diferència entre la reina i les obreres, doncs, no és genètica, sinó conseqüència de l’alimentació.
Altres vegades la determinació del sexe és fisiològica o depèn de factors externs. En el cuc marí bonèl·lia, els individus que viuen lliures des que són larves es converteixen en femelles, mentre que els que són capturats per femelles adultes esdevenen, adherits a la pell d’aquestes i per efecte d’hormones masculinitzadores, mascles pigmeus.
La teoria cromosòmica de l’herència explica les excepcions a la tercera llei de Mendel. Per als gens situats en un mateix cromosoma, la tendència és heretar-los conjuntament. Com més propers són els seus locus, més improbable és que hi hagi recombinació entre ells durant la meiosi i, per tant, més probable és que passin junts a la descendència.
Precisament, la freqüència de recombinació entre dos gens lligats s’utilitza com una estimació de la distància que hi ha entre els seus locus, i serveix per a la construcció dels mapes de cromosomes. Per establir la posició i la distància d’un gen en el mapa del cromosoma, s’utilitzen encreuaments en els quals se segreguen tres parelles d’al·lels (tres locus) –com ara l’encreuament retrògrad entre la descendència de l’encreuament a+ b+ c+ / a+ b+ c+ i el triple recessiu a b c / a b c–, la qual cosa fa possible la detecció dels cromosomes que són fruit d’un entrecreuament doble (que han participat simultàniament en dues recombinacions).
En les abelles, la determinació del sexe és diplohaploide.
RECORDA
La tercera llei de Mendel no té validesa universal, ja que no té en compte el lligament dels gens situats en el mateix cromosoma.
Fins aquí hem considerat, gairebé a la manera de Mendel, els gens com a regidors individuals de caràcters alternatius. Tanmateix, al llarg de la història de la genètica s’ha descobert un intricat ventall d’interaccions i efectes diversos. Algunes situacions genètiques particulars són definides mitjançant els termes següents:
a) Penetració, que és la freqüència amb què es manifesta un gen determinat (en combinació homozigòtica si és recessiu) en el fenotip dels seus portadors.
b) Expressivitat, que és el grau d’expressió fenotípica d’un gen penetrant. A diferència del gen per al color groc dels pèsols, o altres gens mendelians que tenen una penetració i una expressivitat del 100%, el gen dominant per a la corea de Huntington en l’ésser humà –una malaltia nerviosa degenerativa– té una penetració incompleta (alguns portadors no la manifesten mai) i una expressivitat variable (el grau de malaltia varia d’uns individus als altres).
c) Pleotropia, que és l’efecte pel qual un sol gen (mutant) afecta dos o més aspectes del fenotip d’un organisme, que poden semblar no relacionats. Així, les drosòfiles homozigòtiques recessives pel gen «vestigial» tenen les ales vestigials, i els balancins i els pèls dorsals modificats, i són, a més, deficients en longevitat i fertilitat. Moltes malalties humanes (fenilcetonúria, hemoglobina falciforme, etc.), degudes a petits canvis moleculars hereditaris, són pleotròpiques.
d) Gens duplicats, que són els que acumulen els seus efectes sobre un sol caràcter fenotípic sense ser al·lels d’un mateix locus. Els seus efectes poden ser additius, amb dominància o sense, o respondre a una situació d’epístasi.
e) Epístasi, que és la interacció de dos gens no al·lèlics en què un gen (epistàtic) interfereix en l’expressió fenotípica de l’altre gen (hipostàtic) i pot arribar a inhibir-la. En les gallines, per exemple, la presència del gen I és epistàtica sobre el gen del color del locus C. Les gallines de raça Leghorn tenen el genotip IICC i són blanques perquè tenen el gen I. En canvi, les de raça Wyandotte (que són iicc) també són blanques perquè no tenen el gen I i són homozigòtiques recessives pel gen del color (C). En canvi, quan s’encreuen les dues races, els fenotips iiC són acolorits.
f) Caràcters mètrics o quantitatius, que són aquells trets fenotípics, com ara l’estatura o el color de la pell, que presenten una variació contínua entre els individus que és representable gràficament (distribució normal o histograma de freqüències). La seva herència és multifactorial, ja que està regida per factors múltiples o poligens. La influència de l’ambient fa que la variació sigui gairebé contínua en molts dels caràcters mètrics.
9.24. Si destruïm els ovaris d’una gallina o bé es destrueixen sols a causa d’una malaltia, a vegades al seu lloc s’hi desenvolupen testicles. Tot i així, la constitució cromosòmica de la gallina roman invariable. Si encreuem aquesta gallina amb una gallina normal, quina proporció de mascles i de femelles hi haurà entre els seus descendents? I quines proporcions fenotípiques tindran aquests descendents per a un caràcter recessiu lligat al sexe?
9.25. Els caràcters lligats al sexe, ¿es manifesten sempre amb més freqüència en els mascles que en les femelles? Per què?
9.26. Dos gens situats en el mateix cromosoma, ¿poden segregar-se i passar a la descendència amb total independència?
9.27. Quines F1 i F2 cal esperar de l’encreuament entre les races de gallines Leghorn i Wyandotte?
9.28. Si a la drosòfila li falten els seus corresponents al·lels de tipus salvatge (que determinen ulls vermells), l’al·lel autosòmic recessiu bw, que determina els ulls de color marró (brown), interacciona amb l’al·lel recessiu lligat al sexe v, que determina un fenotip d’ulls de color vermellós brillant, i origina mosques amb ulls blancs. Quins genotips i quins fenotips (respecte del color dels ulls) podríem esperar en la descendència que resultaria d’un encreuament entre una femella d’ulls blancs de genotip bw,bw/v,v amb un mascle d’ulls marrons de genotip bw,bw/v+,Y?
9.29. Una espècie comuna de papallona (Colias crocea) té les ales de color groc, però un gen que només s’expressa en les femelles determina ales de color verd. Es tracta, doncs, d’un caràcter d’expressió limitada a un sexe; és a dir, hi pot haver femelles grogues i verdes, però tots els mascles són grocs. En un experiment, es van encreuar una $ d’ales verdes amb un $ d’ales grogues, tots dos de línies pures, i es van obtenir només papallones d’ales grogues.
Observa les fotografies de la columna de la dreta i contesta a les preguntes següents:
a)El caràcter «ales verdes», és dominant o recessiu? Per què?
b)Escriu els genotips de tots els individus en el cas que es tractés d’un gen autosòmic. En cas que hi hagi diferències entre mascles i femelles, de quin tipus serien?
c)Escriu els genotips de tots els individus en el cas que es tractés d’un gen lligat al sexe. En cas que hi hagi diferències entre mascles i femelles, de quin tipus seran?
9.30. En el bestiar boví, el caràcter presència de banyes és determinat per un gen autosòmic recessiu (p), mentre que l’al·lel dominant (P) determina l’absència de banyes.
Un toro sense banyes s’encreua amb tres vaques. De l’encreuament amb la vaca A, la qual té banyes, s’obté un vedell amb banyes; de l’encreuament amb la vaca B, la qual no té banyes, s’obté un vedell amb banyes; de l’encreuament amb la vaca C, la qual té banyes, s’obté un vedell sense banyes.
a) Quin és el genotip del toro i de les tres vaques? Justifica la resposta.
b) Quines proporcions fenotípiques esperaries obtenir de l’encreuament del toro amb la vaca A?
c) Quines proporcions fenotípiques esperaries obtenir de l’encreuament del toro amb la vaca B?
9.31. Llegeix la següent biografia de Gregor Johann Mendel (Heinzendorf, Àustria 1822 – Brno, Txèquia 1884), i contesta a les preguntes que hi ha a continuació:
Mendel entrà en l’orde dels agustinians i el 1847 s’ordenà sacerdot. Fou professor de ciències a la Reial Escola de Brno, després d’haver suspès tres vegades els exàmens que li haurien permès d’ensenyar en centres més avançats. Durant vuit anys, a partir del 1857, cultivà pèsols en el jardí del convent.
[…] Amb els seus experiments va poder demostrar que quan es mesclaven dues característiques, aquestes no es fonien, sinó que conservaven la seva identitat, combinantse segons regles fixes i simples.
[…] Això demostrava que la selecció natural podia treballar lentament, però eficaçment, en la variació natural. Mendel ho pogué assenyalar perquè havia llegit L’origen de les espècies de Darwin, però quan va escriure els seus experiments mai no esmentà Darwin.
Mendel escriví amb cura el resultat dels seus experiments, però, com a aficionat desconegut que era, es pensà que seria més prudent obtenir el padrinatge d’algun botànic d’anomenada […] i envià el seu escrit a Nägeli, un dels botànics més prestigiosos de l’època; […] aquest fullejà l’escrit, trobà que no tenia cap valor i l’hi retornà amb uns comentaris breus i freds que realment desanimaren Mendel.
[…] Eren temps molt difícils; els prussians, guiats per Otto von Bismarck, esdevenien hegemònics a Europa: l’any 1866 Àustria fou vençuda […] i les tropes prussianes ocuparen Brno. Malgrat això, Mendel publicà aquell mateix any el seu treball (seguit d’un altre el 1869) a les Memòries d’Història Natural de Brno. A partir de llavors ja no es dedicà més a la investigació científica per diversos motius: en primer lloc per la freda acollida de Nägeli […], en segon lloc perquè fou nomenat superior del monestir i això li deixava poc temps lliure […] i en tercer lloc perquè s’engreixà notablement i li era difícil ajupir-se contínuament tal com demana el cultiu dels pèsols.
[…] El treball de Mendel va romandre desconegut. Poques persones fullejaren aquell periòdic […] i les que ho feren […] el passaren per alt. Així, Darwin morí el 1882 sense saber que el punt dèbil de la seva teoria s’havia solucionat. Mendel, al seu torn, morí l’any 1884. L’any 1900, De Vries trobà l’escrit de Mendel i per fi es van divulgar, una generació després del seu descobriment, el que ara s’anomenen les «lleis de l’herència de Mendel».
ISAAC ASIMOV, Enciclopèdia Biogràfica de Ciència i Tecnologia
a) A què atribueixes l’èxit de Mendel en el descobriment de les lleis de l’herència, un tema que molts altres havien intentat aclarir sense reeixir-hi?
b) Sense repetir l’enunciat de les seves lleis, fes un breu resum dels descobriments de Mendel.
c) Un cop publicats els resultats a les Memòries d’Història Natural de Brno, quin va ser el futur dels descobriments de Mendel?
d) Intenta explicar per què els contemporanis de Mendel no valoraren l’aportació que aquest va fer. e)¿Hi ha alguna relació entre Mendel i la teoria de l’evolució?
Carabasses.
9.32. Mendel descobrí que el color groc de la beina del pèsol (no el de la llavor) és un caràcter hereditari recessiu, mentre que el color verd és en aquest cas dominant. Si anomenem g el gen recessiu (beina groga) i G el gen dominant (beina verda), digues quins seran els genotips i els fenotips i les proporcions dels encreuaments següents: a) GG × gg;b) GG × Gg; c) Gg × Gg; d) Gg × gg
9.33. En les carabasses, el fruit de color blanc (W) és dominant sobre el de color groc (w), i el fruit en forma de disc (D) és dominant sobre el de forma esfèrica (d). En la taula de peu de pàgina, s’indica el fenotip dels pares i dels descendents d’alguns encreuaments. Si els dos gens són independents, quin serà, en cada cas, el genotip dels pares?
9.34. En una espècie de mosca de la fruita, es coneixen set al·lels diferents del gen que codifica l’enzim fosfatasa àcida. Quants genotips diferents són possi-
Fenotip dels pares
a)Blanc, disc × groc, esfèric
b)Blanc, esfèric × blanc, esfèric
c)Groc, disc × blanc, esfèric
d)Blanc, disc × groc, esfèric
e)Blanc, disc × blanc, esfèric
bles per a aquest gen? Escriu-los, tot usant una notació adequada.
9.35. La forma de les fulles d’una tomaquera pot ser retallada o entera i, respecte de l’alçària, les plantes poden ser nanes o normals. Cadascun d’aquests caràcters està controlat per un gen amb dos al·lels. Aquests gens són independents. En un encreuament experimental es van obtenir els resultats següents:
F0: fulla retallada, alçària normal × fulla entera, planta nana.
F1: totes les plantes amb fulles retallades i alçària normal.
F2: 920 plantes amb fulles retallades, alçària normal; 291 plantes amb fulles enteres, alçària normal; 299 plantes amb fulles retallades, nanes; 101 plantes amb fulles enteres, nanes.
Fixa’t bé en aquests resultats i contesta a les preguntes següents:
a) Quins són els caràcters dominants? Per què?
b) Pensa una notació adequada per representar aquests gens i escriu tots els genotips possibles per als fenotips següents: fulla retallada, fulla entera, alçària normal i planta nana.


Fenotip dels descendents
1/2 blanc, disc; 1/2 blanc, esfèric
3/4 blanc, esfèric; 1/4 groc, esfèric
Tots blanc, disc
1/4 blanc, disc; 1/4 blanc, esfèric; 1/4 groc, disc; 1/4 groc, esfèric
3/8 blanc, disc; 3/8 blanc, esfèric; 1/8 groc, disc; 1/8 groc, esfèric
c) Escriu els genotips de tots els individus de l’encreuament de l’experiment.
d) Quins tipus de gàmetes formaran els individus de la F1? En quines proporcions?
9.36. Els individus representats pels quadrats blaus d’aquest arbre genealògic estan afectats per una anomalia genètica que no afecta la resta d’individus. Suposant que cap dels individus de fora de la família (II-1, III-3 i IV-2) no és portador del gen per a l’anomalia, resol les qüestions següents:
a)Demostra que aquest gen no pot ser dominant.
b)Demostra que aquest gen no pot ser autosòmic.
c)Si es tractés d’un gen recessiu lligat al sexe, quins serien els genotips de tots els individus?
d)Quina és la probabilitat que un nou fill de IV-1 i IV-2 sigui un % afectat o una $ portadora?
9.37. Dibuixa les plaques metafàsiques de la primera i la segona divisió meiòtica d’un organisme amb dos
parells de cromosomes homòlegs, l’un metacèntric i l’altre telocèntric.
9.38. Contesta a les preguntes següents:
a) Si llances enlaire dues vegades una moneda, quina és la probabilitat d’obtenir dues vegades cara?
b) Quina és la probabilitat d’obtenir una vegada cara i una vegada creu si també la llances enlaire dues vegades?
c) Quina és la probabilitat d’obtenir quatre vegades cara i sis vegades creu si la llances deu vegades?
d) Quina és la probabilitat que una parella de ratolins negres, però heterozigòtics ambdós pel gen de l’albinisme (recessiu), tinguin un fill albí?
e) Quina és la probabilitat que la parella de ratolins anterior tingui una ventrada de set ratolins constituïda per quatre ratolins negres i tres d’albins?
9.39. El genetista murcià José Fernández Nonídez va publicar, l’any 1921, el primer manual de genètica en castellà: La herencia mendeliana. Després d’haver llegit el fragment que hi ha a continuació, extret del llibre citat, digues quines són les dues idees centrals del text i posa’n alguns exemples.
L’estudi sistemàtic dels cromosomes sexuals ha proporcionat una base ferma per a la interpretació del procés de determinació del sexe, un dels problemes biològics objecte de més controvèrsies i que ja havien intentat explicar els filòsofs més famosos de l’antiguitat. Al mateix temps, ha permès d’interpretar correctament els resultats d’alguns encreuaments, en els quals el sexe de l’individu és un factor important en la distribució dels caràcters en la descendència. Aquesta modalitat de transmissió hereditària es coneix amb el nom d’herència lligada al sexe.
JOSÉ FERNÁNDEZ NONÍDEZ, L’herència mendeliana
9.40. Quants gàmetes diferents pot formar un individu diploide de genotip AABbCc?
9.41. Si una planta heterozigòtica respecte a dos gens independents (AaBb) s’autofecunda:
a)En quines proporcions trobaràs els genotips AaBb, AAbb i AABb en la descendència?
b)I el fenotip A-B-?
9.42. Digues si el caràcter manifestat pels tres individus de l’arbre genealògic de més avall podria explicarse d’acord amb els punts següents:
1) un gen dominant i lligat al sexe;
2) un gen recessiu i lligat al sexe;
3) un gen holàndric;
4) un gen autosòmic dominant;
5) un gen autosòmic recessiu.


9.43. Com ja saps, el caràcter ulls blancs de la drosòfila està determinat per un gen recessiu lligat al sexe (w).
L’al·lel de tipus salvatge (w+) determina, per contra, ulls vermells. Suposant que s’encreua una femella d’ulls blancs amb un mascle d’ulls vermells i s’obtenen 88 descendents, respon a les preguntes següents:
a)Quants d’aquests exemplars esperes que siguin mascles i quants femelles? Per què?
b)Dels mascles descendents, quants n’esperes que tinguin els ulls blancs? Per què?
c)Si s’aparella una femella descendent de l’encreuament anterior amb un mascle d’ulls blancs i s’obtenen 104 descendents, quants d’aquests esperes que siguin mascles d’ulls blancs? Per què?
1. Llegeix el text de Mendel, que pertany a la seva publicació de l’any 1865 Experiments d’hibridació en plantes, i respon a les preguntes que hi ha a continuació:
En cada un dels 7 encreuaments, el caràcter dels híbrids s’assembla tant a una de les formes paternes que l’altre no s’observa [...]. Els caràcters que es transmeten complets en la hibridació i formen, per tant, els caràcters de l’híbrid s’anomenen dominants i els que queden latents en el procés s’anomenen recessius, [...] perquè encara que els caràcters així designats es retiren o desapareixen completament en els híbrids, reapareixen sense canviar en la seva descendència, com es demostrarà més endavant.
a)Quins són els 7 encreuaments de què parla Mendel? Amb quins organismes va experimentar?
b)En un altre paràgraf d’aquella obra, diu que en l’encreuament experimental el risc d’una falsa fecundació per pol·len estrany és molt petit, ja que entre més de 10000 plantes que van ser examinades, només se’n van trobar uns quants casos. Quin procés seguia Mendel, per fer la hibridació?
c)¿Existeix alguna altra possible relació entre al·lels, a més de la relació de dominància-recessivitat descrita en aquest text? Raona la resposta.
d)De quina manera Mendel va demostrar que els caràcters recessius no desapareixen?
2. En el tomàquet, el fruit de color vermell és dominant sobre el de color groc. Suposa que una planta homozigòtica de fruits vermells s’encreua amb una de fruits grocs i contesta a les preguntes següents:
a)Els fenotips de les plantes de la F1 i de la F2.
b)Les proporcions fenotípiques de la descendència d’un encreuament entre plantes de la F1 i el progenitor de fruits vermells.
c) Les proporcions fenotípiques de la descendència d’un encreuament entre plantes de la F1 i el progenitor de fruits grocs.
3. En el conillet d’Índies, hi ha una sèrie d’al·lels múltiples (4 al·lels, tot simplificant una mica les coses) que determinen el color del pelatge. Les combinacions homozigòtiques d’aquests al·lels determinen els fenotips següents:
CC = negre, ckck = sèpia, cdcd = crema, caca = albí
Aquests al·lels (autosòmics) presenten les relacions de dominància següents (el símbol > vol dir que l’allel de l’esquerra és dominant sobre el de la dreta): C > ck > cd > ca
a)Quants genotips diferents hi haurà en relació amb el locus que determina el color del pèl? Escriu-los.
b)Digues els genotips més probables dels diferents individus d’aquests encreuaments entre conillets d’Índies que es diferencien pel color del pèl:
Negre × negre
Negre × albí
Crema × crema
Sèpia × crema
Negre × albí
Negre × crema
Negre × sèpia
Sèpia × sèpia
c) Escriu els genotips de tots els individus de la F1 i la F2 d’un encreuament entre un mascle negre de genotip Cca i una femella sèpia de genotip ckca .
4. El tret distintiu del goril·la Floquet de Neu era l’albinisme, un caràcter hereditari determinat per un al·lel mutant recessiu. Per tal d’obtenir descendents albins, Floquet de Neu fou aparellat amb tres femelles normals (homozigòtiques) i amb algunes filles d’aquests encreuaments. En tots els casos, tingué fills mascles i femelles, però tots de color normal. Tenint present això, contesta a les preguntes següents:
a)Quina era la probabilitat que Floquet de Neu, aparellant-se amb les femelles normals, tingués un descendent albí? Per què?
b)Quina era la probabilitat que Floquet de Neu tingués un descendent albí si s’aparellava amb una filla resultant dels encreuaments amb les femelles normals? Per què?
c)Escriu els genotips de tots els individus implicats en les dues preguntes anteriors.
d)Explica, fent servir l’exemple de Floquet de Neu, les dues primeres lleis de Mendel.
e)Explica quin de tots els encreuaments possibles ofereix una probabilitat més gran d’obtenir descendència albina.
5. Observa l’arbre genealògic de sota i contesta a les preguntes següents:
a) Suposant que el caràcter indicat està determinat per un únic gen amb dos al·lels, ¿es pot excloure fàcilment que es tracti d’un gen lligat al cromosoma Y? Per què? Quins altres tipus d’herència es poden excloure? Per què?
b) Quins altres mecanismes genètics són, en canvi, possibles? Quin és el més probable? Per què?


6. Destria quina és la resposta correcta per completar la frase següent:
Els cromosomes homòlegs…
a) …s’aparellen durant la meiosi.
b) …s’aparellen durant la mitosi.
c) …s’aparellen durant la mitosi i la meiosi.
d) …no s’aparellen mai.
7. Digues quin dels processos següents no pot esdevenir-se durant la primera profase de la meiosi:
a) La condensació dels cromosomes.
b) L’aparellament dels cromosomes homòlegs.
c) La formació dels quiasmes.
d) La segregació.
8. Copia les frases següents i escriu al costat de cada una si és certa o falsa:
a)Tots els cromosomes de la cèl·lula d’un organisme són morfològicament idèntics.
b)Durant la primera profase de la meiosi, qualsevol cromosoma es pot aparellar amb qualsevol altre del nucli cel·lular.
c)Les cèl·lules resultants de la meiosi tenen només la meitat dels cromosomes que les cèl·lules que l’han començada.
9. Digues si en una espècie diploide pot tenir lloc el següent:
a)La meiosi.
b)La mitosi.
c)La formació de quiasmes i la recombinació genètica.
d)La determinació genètica del sexe.
10. Destria quines són les respostes correctes per completar la frase següent:
Un gen situat en el cromosoma X pot…
a) …ser autosòmic.
b) …ser dominant.
c) …ser holàndric.
d) …presentar al·lelomorfisme múltiple.
Morfologia de la Drosophila melanogaster.
mm
Objectiu
a) Comprovació de les lleis de l’herència per mitjà d’encreuaments experimentals.
Material
Agar-agar, alcohol etílic, embut, estufa de cultiu, farina de blat de moro, flascons de cultiu, llevat fresc, lupa binocular, nipagin (o un altre fungicida equivalent), paper, paper de filtre, pinzells del 0, soques diverses de Drosophila melanogaster, taps de cotó o de matèria plàstica, tisores.
mm
mm Pupa
La mosca del vinagre (Drosophila melanogaster) és un insecte dípter utilitzat –juntament amb algunes altres espècies del mateix gènere– en els laboratoris d’investigació i en les aules escolars per a l’estudi de la genètica. Els seus cromosomes (2n = 8) han estat mapats amb precisió, ja que es coneixen milers de mutants en aquesta espècie, i tots els aspectes de la biologia d’aquests organismes són dels més ben estudiats.
La drosòfila, com tots els dípters, té un desenvolupament indirecte mitjançant una metamorfosi completa: de l’ou surt una larva que després d’haver sofert dues mudes (hi ha, doncs, tres fases o estadis larvaris) es transforma en una fase quiescent, la crisàlide, en el curs de la qual tenen lloc les profundes transformacions que porten a l’imago o insecte adult. Tot aquest cicle biològic és molt ràpid i la duració total depèn de la temperatura de cultiu: 10 dies a 25 °C i 15 dies a
Les xifres indiquen la durada, en dies, de les diferents fases a 25 °C.
Esquema del cicle biològic de la Drosophila melanogaster.
Exemplar yellow de drosòfila.
Il·lustració del cicle biològic de la Drosophila melanogaster.
17 °C. A les sis hores de néixer, mascles i femelles s’aparellen, i aquestes ja ponen ous abans no passen 24 hores (cada femella en pon uns quants centenars en qüestió de dies).
Al laboratori, les drosòfiles es cultiven en flascons de vidre a l’interior dels quals es posa un medi alimentari que consisteix en farina de blat de moro i agar-agar, segons la recepta següent (per preparar uns 40 flascons d’1/8de litre, en els quals es posa un parell de dits de farinetes):
a) 18 g d’agar-agar i 3 cullerades soperes de sucre en 1200 cm3 d’aigua posats al foc, a ebullició, evitant que s’hi formin grumolls.
b) Quan bull, s’hi afegeixen 260 g de farina de blat de moro en 600cm3 d’aigua i es deixa coure, remenant, durant uns deu minuts.
c) Es retira del foc i s’hi afegeixen 3 g de nipagin (un fungicida, per evitar floridures) en 33 cm3 d’alcohol. Es remena i es posa en els flascons abans no qualli (és útil fer servir un embut fet amb la part superior d’una ampolla de plàstic retallada).
Un cop solidificades les farinetes a l’interior dels flascons, s’eixuguen, si cal, les parets interiors amb una mica de paper de filtre i s’empolsina la superfície del menjar amb una mica (una punta de cullereta) de llevat fresc picat ben menut. Finalment, es deixa caure damunt la pasta una tira de paper plegada en acordió (perquè les larves a punt de metamorfosar-se en pupa trobin un lloc sec on fer-ho).
Òvul envoltat de cèl·lules nutrícies
Tub ovàric, on té lloc la meiosi (igual que en les gònades masculines, que aquí no són representades)
Espermatozoide
Identificació dels sexes
Mascles i femelles adults es distingeixen fàcilment per l’extrem de l’abdomen, més arrodonit, petit i fosc (per la cara dorsal) en el mascle i més gran, amb anells foscos que alternen amb bandes clares, en la femella. A més, els mascles porten les denominades pintes sexuals de color negre, al primer artell del tars del primer parell de potes, que, a la lupa, destaquen clarament. En les pupes ja ben formades, aquestes pintes es transparenten i, per tant, ja és possible la identificació dels sexes en la fase de crisàlide.
La facilitat en la cria i la manipulació de la Drosophila melanogaster la fa molt útil per a l’aprenentatge de la genètica. Per seleccionar els individus, com també per procedir al comptatge de les progènies, s’adormen les mosques introduint-les en un flascó de vidre amb un cotonet xop d’èter etílic (alerta, però, perquè una sobredosi els és letal).
A l’hora de procedir als encreuaments, cal cerciorar-se que les femelles siguin verges, ja que s’aparellen poques hores després de néixer. Per aquest motiu, cal buscar-les durant les primeres hores d’emergència d’una generació, ben despigmentades o fins i tot amb les ales encara sense estirar, símptomes inequívocs d’extrema jovenesa. Un cop triades, es posen dos o tres mascles i dues o tres femelles en un flascó amb medi de cultiu fresc. Cal dipositar els exemplars encara adormits en una paperineta, perquè si cauen sobre les farinetes del fons s’hi enganxen i no se’n poden deslliurar. Passats uns dies, i quan l’activitat de les larves dins les farinetes denota l’eficàcia reproductora dels progenitors, cal retirar aquests últims perquè, altrament, en emergir les mosques de la nova generació, s’hi confondrien.
Per preparar la F2 cal posar dos o tres mascles i dues o tres femelles (en aquest cas, no cal que siguin verges) en un nou flascó de cultiu i repetir les mateixes operacions indicades abans.
Vegem a continuació algunes de les soques mutants i els encreuaments més adequats per a l’aprenentatge de la genètica. (Entre parèntesis figura la localització cromosòmica.)
Cromosoma 1
yellow (y) (I, 0,1). Cos, quetes i venes alars de color groc.
white (w) (I, 1,5). Ulls de color blanc.
white apricot (wa) (I, 1,5). Ulls de color ataronjat.
Fotografia al microscopi òptic de cromosomes gegants de Drosophila melanogaster (1000x).
Els mascles i les femelles de drosòfila s’aparellen molt poques hores després d’haver emergit de la crisàlide. Per tant, cal estar segurs d’escollir individus no aparellats si es vol procedir a un determinat encreuament experimental. Cal triar femelles no fecundades, verges. La despigmentació o les ales encara no desplegades són algunes de les proves que en palesen la jovenesa, i que per tant seran útils a l’hora de triar els individus per a l’experiment.
crossveinless (cv) (I, 13,7). Venes transversals, anteriors i posteriors, molt reduïdes o absents.
carmine (cm) (I, 18,9). Ulls de color vermell –carmí– fosc i translúcid. En combinació amb bw, lleugerament més clar que bw sol. cut (ct) (I, 20,0). Ales acabades en punta i retallades. Ulls lleugerament més petits i en forma de ronyó.
Iozenge (Iz) (I, 27,7). Ulls estrets, amb àrees més fosques i facetes fusionades. Les pintes tarsals estan reduïdes i part de les femelles són estèrils.
vermilion (v) (I, 33,0). Ulls de color vermell. miniature (m) (I, 36,1). Ales petites que no passen de l’extrem de l’abdomen, amb superfície grisosa, més opaca que no pas en el fenotip normal.
forked (f) (I, 56,7). Quetes curtes, escapçades, bifurcades o deformades.
Cromosoma 2
black (b) (II, 48,5). Cos, tarsos i venes alars de color fosc, quasi negre. cinnabar (cn) (II, 57,5). Ulls d’un color vermell més viu que no pas el fenotip normal. Interacciona amb bw. vestigial (vg) (II, 67,0). Ales i balancins molt reduïts. La viabilitat és només d’un 60-70% de la de les soques normals.
brown (bw) (II, 104,5). Ulls de color més fosc, de color de vi en les mosques més joves i púrpura en les de més edat. En combinació amb cinnabar (cn) i vermilion (v) interacciona i produeix un fenotip d’ulls blancs.
Cromosoma 3
sepia (se) (III, 26,0). Ulls de color sèpia.
Stubble (Sb) (III, 58,2). Letal en combinació homozigòtica. El fenotip de l’heterozigot presenta quetes reduïdes (de la meitat de la seva llargada). Aquesta alteració cromosòmica està associada a una inversió i sovint es combina amb una altra inversió, portadora d’un altre letal (v. Ubx) del mateix cromosoma, de manera que la soca es manté sempre heterozigòtica (els homozigots no són viables).
Ultrabithorax (Ubx) (III, 58,8). Letal en combinació homozigòtica. El fenotip es caracteritza per la grandària (gairebé doble) dels halteris i la presència característica d’un o més pèls a la superfície del segment apical de l’halteri. Aquesta alteració cromosòmica està associada a una inversió i sovint es combina amb una altra inversió portadora d’un altre letal (v.Sb) del mateix cromosoma, de manera que la soca es manté sempre heterozigòtica (els homozigots no són viables).
ebony (e) (III, 70,7). Cos fosc, progressivament més pigmentat amb l’edat de la mosca.
rough (ro) (III, 91,1). Ulls d’aspecte arrugat i més petits que els del fenotip normal.
Cromosoma 4
eyeless (ey) (IV, 0,02). Ulls més petits que no pas en el fenotip normal que van des de l’absència total fins a grandàries properes a les normals.
spapol (sp) (IV, 0,05). Ulls de superfície rugosa, irregular i més petits.
Mutants especialment aptes per al següent:
– Monohibridisme. Normal amb qualsevol dels següents: sepia, ebony, rough, eyeless o spapol – Dihibridisme. Cadascuna de les parelles de soques següents: eyeless × ebony, eyeless (o spapol) × black. – Lligat al sexe. Normal amb qualsevol dels següents: yellow, white, white apricot o miniature. – Interacció: cinnabar × brown
CROMOSOMA X
0,1 yellow (y)
1,5 white (w, wa…)
13,7 crossveinless (cv)
18,9 carmine (cm)
20,0 cut (ct)
33,0 vermilion (v)
36,1 miniature (m)
CROMOSOMA 2
El mòrgan és la unitat de distància en el mapa cromosòmic, dividit en 100 centimòrgans, en el qual la mitjana de recombinacions és la unitat.
En un centimòrgan, la possibilitat de recombinacions és de l’1%.
Mapes cromosòmics de Drosophila melanogaster.
3
CROMOSOMA 4
56,7 forked (f) 0,02 eyeless (ey)
27,7 lozenge (lz) 26,0 sepia (se) 58,2 stubble (Sb) 58,8 ultrabithorax (Ubx) 70,7 ebony (e) 91,1 rough (ro)
spapol (sp)
– Al·lelomorfisme múltiple: white × white apricot. – Dihibridisme amb un dels dos gens lligat al sexe. Cadascuna de les parelles següents: yellow × ebony, yellow × sepia o miniature × sepia. – Gens letals: normal × Stubble-Ultrabhitorax.
– Gens lligats. Distància aproximada d’1 centimòrgan: yellow × white (ambdós lligats al sexe). Distància aproximada de 10 centimòrgans: black × cinnabar o white × crossveinless (ambdós lligats al sexe). Distància aproximada de 20 centimòrgans: ebony × rough. – Interacció en gens lligats: brown × cinnabar (gairebé, però, a 50 centimòrgans).
Aquest treball pràctic s’ha d’efectuar en diferents sessions repartides al llarg d’algunes setmanes. Algunes sessions no es poden demorar, sinó que cal fer-les tot just les femelles comencen a emergir.
Un cop triats els encreuaments a fer, anota els passos seguits per obtenir la F1; un cop produïda, observa-la a la lupa i anota’n els resultats. Prepara el procediment per obtenir la F2 i un cop l’hagis obtinguda anota’n els resultats. Compara els resultats obtinguts amb els resultats esperats i interpreta’ls.
10
L’expressió del material hereditari: de l’ADN a les proteïnes. Les mutacions
1.L’ADN és el material hereditari
2.Expressió del material genètic
3.La traducció o síntesi de proteïnes
4.Les mutacions
5.Regulació de l’expressió dels gens
6.Més enllà del genoma: l’epigenètica
L’ampliació, per mitjà de la PCR, de mostres minúscules d’ADN té una utilitat creixent en la medicina forense.
L’ADN, que forma els cromosomes de les cèl·lules, és el material hereditari. Les unitats de l’ADN s’anomenen gens. Aquesta informació genètica es transmet de generació en generació per mitjà d’un procés fidel de duplicació, el qual, no obstant això, està exposat a errors de còpia o de repartiment, és a dir, a mutacions. L’expressió dels gens implica la seva transcripció prèvia en ARN i, finalment, el trasllat de la informació que contenen fins a una seqüència d’aminoàcids (traducció), mitjançant un codi genètic o codi d’equivalències entre els triplets de bases i els diferents aminoàcids.
La lectura del missatge genètic recorda la música de les màquines de discos (jukebox) dels cafès. Prement un botó es pot escollir, entre els discos de la màquina, aquell que hom vol escoltar, però en cap cas no es pot modificar el text o l’execució de la música gravada.
Una vegada contrastada experimentalment la teoria cromosòmica de l’herència al principi del segle XX, calia investigar la naturalesa del material hereditari. Si els cromosomes estaven constituïts per proteïnes i àcids nucleics, la funció hereditària havia de recaure en un d’aquests dos elements. En aquells moments, molts biòlegs estaven més inclinats a atorgar aquest paper a les proteïnes (se sabien més coses sobre la seva estructura molecular i són molt més variades que els àcids nucleics). L’any 1944, Oswald Theodore Avery i els seus col·legues, basant-se en una línia d’investigació oberta anteriorment per l’anglès Frederick Griffith, identificaren els gens amb l’ADN.
L’any 1928, Frederick Griffith va començar a treballar amb el bacteri Streptococcus pneumoniae, causant de la pneumònia, del qual es coneixien dues formes:l’una virulenta i llisa, denominada S (de l’anglès smooth, que vol dir ‘llis’), en què la presència d’una càpsula gelatinosa dóna un aspecte brillant i llis a la colònia; i l’altra, menys virulenta i rugosa, denominada R (de l’anglès rough, ‘rugós’), en què la manca de càpsula gelatinosa de les cèl·lules fa les colònies aspres i irregulars. Els ratolins als quals inoculava bacteris S morien, però no els que eren
Els nivells de compactació creixent de la informació continguda en els cromosomes.
L’experiment de Griffith i la naturalesa del material hereditari.
Bacteris amb càpsula (S). Inoculació
Bacteris sense càpsula (R) Bacteris S morts per escalfament
Mescla de bacteris R i de bacteris S morts per escalfament
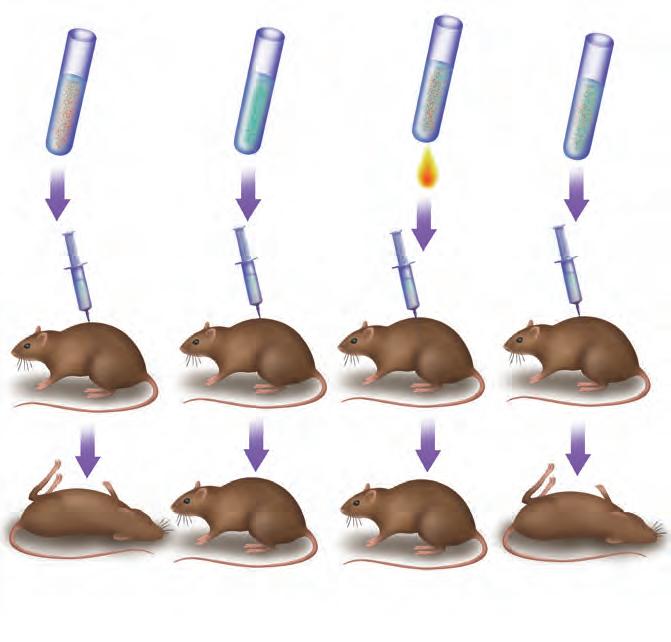
inoculats amb bacteris R, ni tampoc un tercer grup d’inoculats amb bacteris S morts per escalfament.
En canvi, el que resultava sorprenent de l’experiment de Griffith (i que ell no va poder explicar del tot) és que un quart grup de ratolins inoculats amb una mescla de bacteris R i bacteris S (aquests darrers morts per escalfament) morien i en la seva sang es podia constatar la presència de bacteris S.
Efectivament, l’extracte de bacteris S morts tornava virulents alguns cultius de bacteris R quan hi era addicionat. Griffith va suposar, correctament, que s’havia produït una transformació dels bacteris R en S a partir d’un principi transformador, que no pogué identificar, procedent dels bacteris S morts.
Oswald Theodore Avery i els seus col·legues van demostrar, l’any 1944, que l’ADN és el material genètic, tot reprenent el treball que Griffith havia començat l’any 1928. En les dècades successives, la genètica anà incorporant progressivament l’ús dels microorganismes com a organismes d’investigació.
Oswald Theodore Avery i els seus col·legues, Colin Munro MacLeod i MacLyn McCarty, de l’Institut Rockefeller de Nova York, foren els qui demostraren que el principi transformador de Griffith era l’ADN. Començaren eliminant, per hidròlisi enzimàtica, totes les proteïnes de l’extracte i només hi deixaren l’ADN. Tot seguit, comprovaren que l’extracte continuava tenint capacitat per atorgar virulència. Després, van procedir a l’inrevés: en retiraren l’ADN i hi deixaren només les
proteïnes. El resultat va ser que aquella mena d’extracte no presentava cap capacitat de transformació dels bacteris R en S. Finalment, encara van fer una altra prova. Tractaren l’extracte sencer amb l’enzim ADN-asa, que hidrolitza l’ADN, i comprovaren que l’extracte perdia la capacitat transformadora. La conclusió és clara: el principi transformador és l’ADN.
A banda dels resultats, aquests treballs són importants en la història de la biologia perquè iniciaren l’ús –que s’ha fet extensiu– de microorganismes (fongs, bacteris, bacteriòfags…) en la investigació genètica, ja que facilita l’anàlisi de quantitatselevadíssimes de descendents. En el cas dels experiments d’Avery, aquests també iniciaren un model de treball experimental que es féu comú més endavant: l’ús de proves biològiques o enzimàtiques per demostrar aspectes bioquímics.
Així mateix, aproximadament per la mateixa època, en l’experimentació biològica es començà a difondre l’ús d’isòtops radioactius, els quals permetien usar molècules «marcades» i fer-ne el seguiment, tal com feren, per exemple, Alfred Day Hershey i Martha Chase.
Detalls de l’estructura en doble hèlix de l’ADN (conformació B).
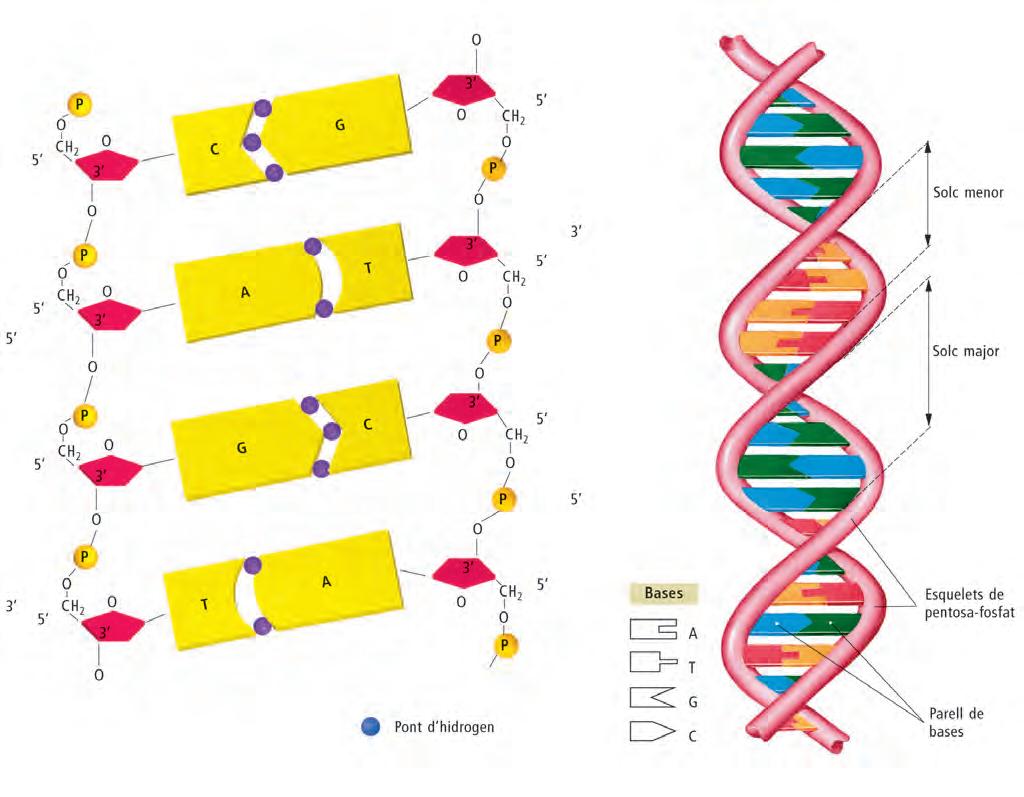
Bacteriòfags T2 parasitant un microorganisme.
A la dècada de 1940, la comunitat científica no estava gaire preparada per copsar la transcendència dels treballs del grup d’Avery, de manera que el següent pas decisiu no arribaria fins a l’any 1952, amb les investigacions d’Alfred Hershey i Martha Chase.
Efectivament, aquests investigadors, que treballaven amb el bacteriòfag T2 d’Escherichia coli, van demostrar, marcant amb l’isòtop radioactiu 35S la proteïna i amb el 32P l’àcid nucleic, que només l’ADN del bacteriòfag i no la seva part proteica penetra a l’interior del bacteri per infectar-lo. És a dir, la informació genètica per a la síntesi de nous virus es troba en l’ADN i no en la proteïna.
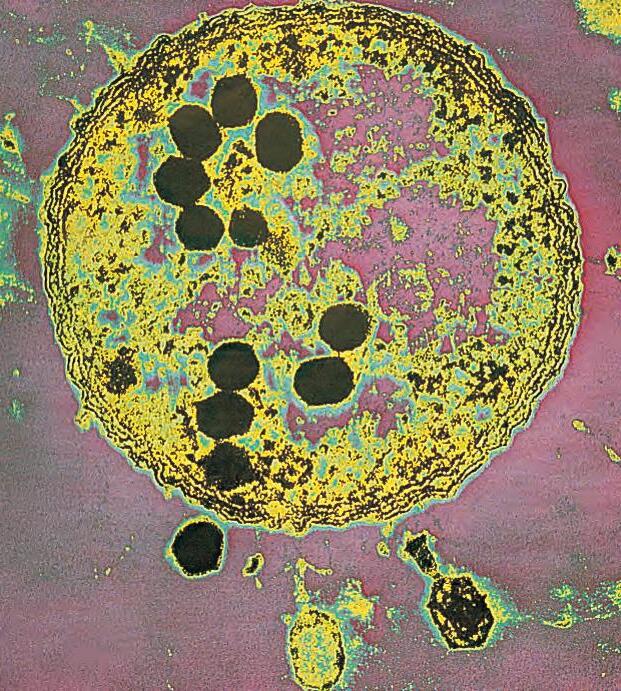
L’experiment de Hershey i Chase.
Alliberament de les partícules de la nova progènie; algunes contenen 32P en els cromosomes i no n’hi ha cap que contingui 35S en la coberta
Replicació del fag
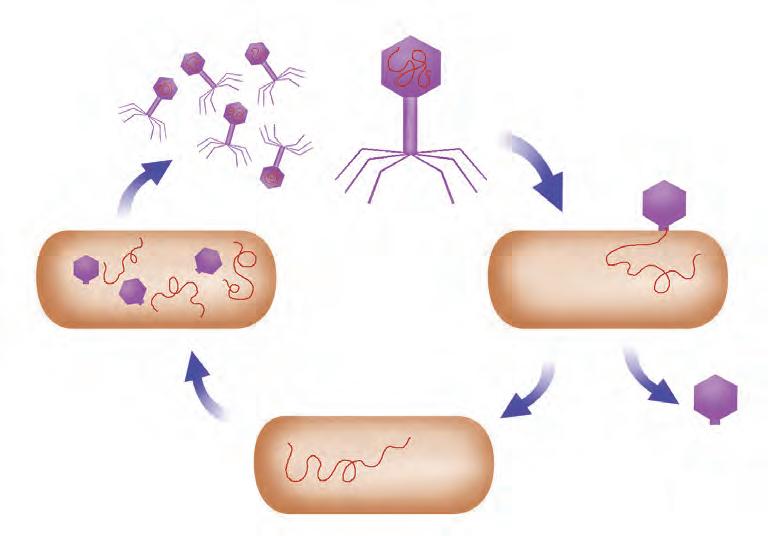
ADN marcat amb 32P
Coberta proteica marcada amb 35S
ADN marcat amb 32P
Adsorció del virus sobre la cèl·lula hoste
Agitació en el mesclador
Proteïna buida marcada amb 35S
10.1. L’any 1952, Alfred Day Hershey i Martha Chase van portar a terme un experiment que demostrava la funció biològica de l’ADN. Explica en què va consistir, amb quins organismes el van dur a terme i quina importància va tenir en aquell moment.
10.2. Descriu l’estructura d’una cadena d’ADN, explica quins tipus de subunitats la componen i com estan unides.
10.3. Quines proves permeten afirmar que l’ADN és el material genètic? Quines són les propietats de les molècules d’ADN que el fan apte per ser el material genètic? Quines característiques ha de posseir una molècula per poder acomplir aquesta funció?
10.4. L’any 1944, Avery i els seus col·legues van publicar el treball Studies on the chemical transformation of pneumococcal types, en què donaven compte dels resultats dels seus experiments:
«En l’exemple estudiat, un material molt pur i lliure de proteïna, compost en la seva major part, si no exclusivament, d’ADN, pot estimular variants R no capsulades de pneumococs […] perquè produeixin un polisacàrid capsular idèntic en la seva especificitat al de les cèl·lules a partir de les quals s’havia aïllat la substància inductora. […] El material capsular no tan sols es reprodueix en les generacions següents, sinó que el mateix factor desencadenant […] es reduplica en les cèl·lules filles.»
a) En què van consistir els experiments del grup d’Avery?
b) Com s’ho havien fet, Avery i els seus col·laboradors, per obtenir un material lliure de proteïna?
c) Què significa l’expressió «variants R no capsulades de pneumococs»?
d) Quina era l’especificitat de les cèl·lules a partir de les quals s’havia aïllat la substància inductora?
e) Per què el factor desencadenant es reduplica en les cèl·lules filles?
10.5. La biologia molecular disposa de força tècniques pròpies.
a) Explica alguns dels trets més destacats que caracteritzen l’experimentació de la biologia moderna.
b) Explica, segons el teu parer, per què és tan emprat aquest tipus d’experimentació.
c) Fes una relació de tots els experiments que coneguis en què s’usen isòtops radioactius.
d) Quins són els organismes més adequats per a la investigació dels aspectes moleculars de la genètica? Per què? En concret, quins s’han utilitzat més?
Durant les dècades de 1930 i 1940, abans que els treballs d’alguns científics demostressin la funció hereditària de l’ADN, molts investigadors pensaven que eren les proteïnes les que desenvolupaven aquesta funció hereditària.
Streptococcus pneumoniae vistos al microscopi electrònic de rastreig.
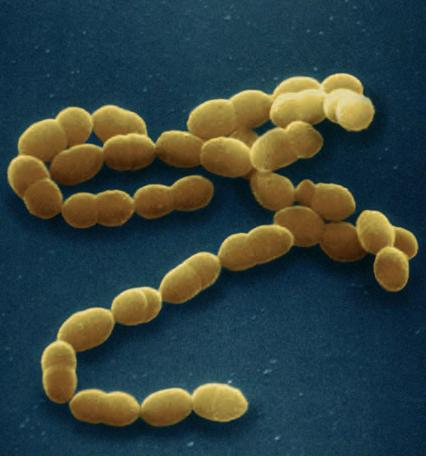
Un gen, un enzim
El primer descobriment de la relació entre un defecte genètic i una anomalia bioquímica fou realitzat, l’any 1909, pel metge anglès Archibald Edward Garrod quan postulà que l’alcaptonúria, una malaltia hereditària, és deguda a la manca d’un enzim que posteriorment s’identificà amb l’oxidasa de l’àcid homogentísic o alcaptona, que, en condicions normals, actua en la via de degradació dels aminoàcids amb anells aromàtics.
Amb l’experiment de Hershey i Chase, quedava establert que l’ADN era el material hereditari. L’interès pel seu estudi es féu encara més evident. Un any després, el 1953, James Dewey Watson i Francis Crick van publicar el seu cèlebre article en què explicaven l’estructura en doble hèlix de l’ADN. Cada vegada era més evident que per aprofundir els coneixements de la biologia calia conèixer a fons l’estructura i la replicació (duplicació) de l’ADN.
Cap a la dècada anterior, la de 1940, l’anàlisi genètica de les mutacions realitzada pels nord-americans George Wells Beadle i Edward Lawrie Tatum amb el fong Neurospora crassa i per Joshua Lederberg amb Escherichia coli portà a l’evidència que els gens codifiquen proteïnes i féu famosa l’expressió «un gen, un enzim». Per aquests treballs, Beadle, Tatum i Lederberg reberen el premi Nobel de medicina l’any 1958.
Les dècades de 1950 i 1960 van ser transcendentals per a la consolidació de la genètica molecular, tal com la dècada de 1970 ho seria per a l’avenir de l’esplendor de l’enginyeria genètica. Fou llavors que es descobriren les línies principals de com es transmet la informació genètica. Si bé la informació hereditària està continguda en l’ADN, els components funcionals actius de les cèl·lules són les proteïnes, i la seqüència d’aminoàcids de les proteïnes és el missatge hereditari.
L’ADN, que conté la informació hereditària, dirigeix la síntesi de l’ARN en un procés que rep el nom de transcripció i que comporta la formació d’una classe d’ARN: l’ARN missatger o ARNm. Una vegada al citoplasma, la informació continguda en aquest ARNm (que és una còpia fidel de la de l’ADN) serveix habitualment per a la síntesi d’una cadena polipeptídica (proteïna). Aquest procés de traducció té lloc en els ribosomes –formats per ARN ribosòmic (ARNr) i proteïnes–, mitjançant l’ajut d’una tercera classe d’ARN, els ARN de transferència o ARNt, que transfereixen al polipèptid en formació els aminoàcids per als quals presenten especificitat. El flux de la informació genètica (que, a vegades, rep el nom de «dogma central» de la biologia molecular) es pot resumir tal com expressa l’esquema de sota (els retrovirus en representen una excepció).
2.1.
S’anomena replicació de l’ADN el procés de duplicació o síntesi d’aquest àcid nucleic que té lloc en cada generació cel·lular; en el cas de les cèl·lules eucariotes, la replicació té lloc en el període S del cicle de la cèl·lula, abans no comenci la seva divisió. Aquesta síntesi compleix unes «regles» que, en la seva major part, són vàlides també per a la síntesi de l’ARN o transcripció.
a) Les noves cadenes de nucleòtids se sintetitzen copiant brins d’ADN preexistents o motlles (com que en la replicació es copien els dos brins de la doble hèlix d’ADN, en resulten dues dobles hèlixs). En conseqüència, les noves cadenes conserven la informació (seqüència de les bases dels nucleòtids) del motlle original, malgrat que la seva seqüència no és idèntica, sinó complementària de la del motlle.
b) La síntesi dels nous filaments es fa sempre i únicament en el sentit 5’ → 3’, ja que l’ADN motlle es «llegeix» en sentit 3’ → 5’ (per aquest motiu les seqüències de nucleòtids de l’ARN s’escriuen i es llegeixen d’esquerra a dreta; així, per exemple, quan escrivim AUU volem dir, de fet, [5’] AUU [3’]).
c) Els enzims que copien els àcids nucleics són polimerases. Així, les ADN-polimerases són els enzims que sintetitzen més ADN a partir d’un motlle preexistent.
Quan es va descobrir la transcendència de l’ADN i de la seva duplicació, s’especulà molt sobre si aquesta era dispersiva (en aquest cas, no es conservarien les cadenes originals), conservadora o semiconservadora. És a dir, si la nova doble hèlix d’ADN (nou dúplex) era completament nova (per oposició a la molècula original, que romandria intacta en el cas de la hipòtesi conservadora), o bé si el que succeïa era que es formaven dos dúplexs, cadascun d’ells constituït per un bri antic i un de nova síntesi.
La primera demostració d’aquesta última possibilitat, hipòtesi semiconservadora, fou aportada l’any 1958 per Matthew Meselson i Franklin Stahl, que, també en aquest cas, usaren microorganismes en els seus experiments. Aquests científics cultivaren el bacteri Escherichia coli primerament en un medi amb sals d’amoni amb 15N i després amb 14N, que donaven lloc a la formació d’ADN «pesant» i «lleuger», respectivament, els quals es poden separar per centrifugació. Gairebé a la mateixa època, J. H. Taylor i els seus col·legues dugueren a terme experiments realitzats amb bases marcades amb isòtops radioactius ([3H]timidina, concretament) en cèl·lules d’arrel de lliri i demostraren que en els eucariotes passava el mateix.
Cadenes de nova síntesi
ADNoriginal
Polaritat de les cadenes d’ADN en la forqueta de replicació.
Etapes inicials del procés de la replicació: formació de la forqueta de replicació.
Origen de la replicació
Obertura local de l’hèlix d’ADN


Síntesi de l’ARN encebador
La cadena nova d’ADN comença la síntesi de la cadena conductora


Les cadenes encebadores d’ARN comencen la síntesi de cadenes addicionals d’ADN




Forqueta 1
Forqueta 2
L’EXPERIMENT DE MESELSON I STAHL:LA REPLICACIÓ ÉS SEMICONSERVADORA
Generacions
0 1 2 3
Tub de centrifugació
Centrifugació de l’ADN mesclat amb una solució concentrada de CsCl
Localització de l’ADN lleuger
14N-15N ADN híbrid
ADN pesant
El CsCl forma un gradient de concentració creixent cap al fons
La localització de l’ADN es pot determinar per l’absorció de la llum ultraviolada. La solució d’ADN absorbeix molt a 260 nm
Resultats observats
Resultats observats
Tipus d’ADN Sedimentació
Pesant Cultiu amb 15N
100 % híbrid Cultiu amb 14N 50% híbrid
lleuger Cultiu amb 14N
14N 14N-15N 15N
ADN de la cèl·lula abans de ser transferida al medi amb 14N
En centrifugar, l’ADN se situa més amunt o més avall segons sigui lleuger o pesant, fins que ocupa una posició en què la seva densitat és igual a la de l’entorn
híbrid
lleuger Cultiu amb 14N
ADN de cèl·lules d’una generació després del transferiment al medi amb 14N
ADN de cèl·lules de dues generacions després del transferiment al medi amb 14N
Interpretació
Interpretació
Cadena conductora motlle de la forqueta
Cadena retardada motlle de la forqueta esquerra
Direcció de desplaçament de la forqueta
Cadena retardada motlle de la forqueta dreta
ADN sintetitzat més recentment
Mecanisme de la replicació
Cadena conductora motlle de la forqueta dreta
La síntesi de l’ADN és un procés molt complex que s’inicia en unes regions del cromosoma denominades orígens, les quals són úniques en el cromosoma bacterià i múltiples en els eucariotes.
Durant la replicació, la doble hèlix de l’ADN progenitor es desenrotlla temporalment. Cada filament serveix de motlle per a la formació d’una cadena complementària. El procés implica la formació de dues forquetes de replicació que es desplacen en sentits oposats a partir de l’origen. En cada forqueta, la síntesi és bidireccional, és a dir, es copien les dues cadenes.
Les ADN-polimerases catalitzen la formació de les noves cadenes a partir de desoxiribonucleòtids trifosfats. Tanmateix, com que no poden iniciar un bri d’ADN a partir del no-res, necessiten un «iniciador» d’ARN (encebador), damunt de l’extrem 3’ del qual poden addicionar nucleòtids.
Al costat de la funció principal de les ADNpolimerases, també hi intervenen altres enzims («primases», que sintetitzen els encebadors d’ARN; «helicases», que obren l’hèlix de l’ADN; nucleases, ligases, topoisomerases…), proteïnes iniciadores i altres encebadors constituïts per ARN. Tots plegats formen un gran complex molecular íntimament unit, ben bé una gran «màquina de replicació» (que polimeritza de l’ordre de 50 nucleòtids per segon en les cèl·lules dels mamífers i deu vegades més en els procariotes).
La forqueta de replicació és asimètrica i la síntesi sobre el filament conductor és contínua. Però, com que el nou ADN se sintetitza en sentit 5’ → 3’, el que es forma sobre la cadena retardada ha de sintetitzar-se inicialment a trossets curts (fragments d’Okazaki) que després s’uneixen en un moviment de «punt endavant i punt enrere» de l’ADNpolimerasa que hi opera.
Cadascuna de les cadenes de nucleòtids de l’ADN actua com a motlle per a la formació d’una cadena complementària mitjançant l’aparellament de T amb A i de C amb G.
S’anomena replicació de l’ADN el procés de duplicació o síntesi de l’àcid nucleic.
La transcripció, en canvi, és el procés de formació d’una molècula d’ARN a partir d’una de les dues cadenes d’un filament d’ADN.
De les dues cadenes d’ADN nou, l’una, el bri conductor, se sintetitza de manera contínua, mentre que l’altra, el bri retardat, se sintetitza de manera discontínua, en una mena de procés de «repunt». Amesura que van quedant al descobert nous segments d’ADN motlle (en sentit 3’ → 5’), es van formant uns segments anomenats «segments d’Okazaki» (en honor del seu descobridor, Reiji Okazaki), constituïts per curts trams d’ARN encebador i ADN nou. Posteriorment, els ARN encebadors són eliminats, mentre que els fragments d’ADN queden units entre si. En les cèl·lules eucariotes, la replicació comporta, finalment, l’empaquetatge de l’ADN nou en nucleosomes.
Fidelitat de la replicació
La fidelitat de la còpia de l’ADN és extraordinària (només un error cada 107 parell de bases copiades). A més, repetits mecanismes enzimàtics de «lectura i correcció» detecten i reparen les incorreccions de parells de bases mal aparellats. No obstant això, qualsevol error de còpia o de repartició del material entre les cèl·lules filles produirà un canvi en el material genètic, és a dir, una mutació
Correcció de proves
L’ADN-polimerasa és molt fidel, però a vegades es poden produir aparellaments A-C o G-T incorrectes. El mateix enzim que catalitza la síntesi de la nova cadena –és a dir, l’ADN-polimerasa– abans de posar cada nou nucleòtid verifica si el darrer presenta un aparellament correcte amb el que li fa de motlle. Si el nucleòtid no és correcte l’elimina i ho intenta de nou. Aquest mecanisme eleva la fidelitat del procés de còpia fins a menys d’un error per cada 10 7 bases copiades.
L’ADN experimenta alteracions de manera contínua, com ara desaparellaments, pèrdues del grup amino de la citosina (que passa a uracil), o pèrdua de bases púriques (A, G). En el temps que es triga a llegir aquesta frase, l’ADN del nostre cos perd unes 10 12 bases púriques. Molts d’aquests errors són corregits per una bateria d’enzims de reparació específics. Tanmateix, alguns errors (per exemple els aparellaments T-T que bloquegen la replicació i que s’anomenen dímers de timina) es van acumulant i són afavorits per determinats factors ambientals com ara la llum ultraviolada. Una de les conseqüències més visibles d’aquest fet és el càncer, que augmenta la seva incidència de manera exponencial amb l’edat.
2.2. La transcripció de l’ADN
La transcripció és el procés de formació d’una molècula d’ARN complementària d’un filament d’ADN. Només es copia una de les dues cadenes de l’ADN dúplex, la cadena codificadora. Normalment, la molècula d’ARN formada actua com un ARN missatger que dirigirà, posteriorment, la síntesi de la proteïna corresponent. En alguns casos, però, el producte final d’altres gens és el mateix ARN: ARN ribosòmic o ARN de transferència.
Mecanisme de la transcripció
La transcripció és un procés catalitzat per l’enzim ARN-polimerasa. D’aquest enzim, se’n coneixen tres tipus en les cèl·lules eucariotes i només un en els procariotes. La transcripció s’inicia quan l’ARN-polimerasa reconeix una seqüència de bases promotora prop del principi del gen que es copia, com ara les seqüències TTGACA i TATATT. Aleshores, es produeix l’obertura temporal de la doble hèlix i s’inicia la síntesi de l’ARN a partir del seu extrem 5’, mentre es va llegint el filament d’ADN en sentit 3’ → 5’, a partir de ribonucleòtids activats (nucleòtids trifosfat). El procés té una velocitat considerable, de gairebé 2000 nucleòtids per minut.
La cadena d’ARN en creixement va quedant lliure, fet que facilita que una segona i una tercera ARN-polimerasa catalitzin noves síntesis en un procés múltiple que pot generar centenars de transcrits d’ARN en qüestió de minuts. Quan l’ARN-polimerasa troba una seqüència de terminació i la reconeix, es desenganxa i la síntesi cessa.
Lloc d’inici
Promotor ARN-polimerasa Inici de la síntesi d’ARN
Gen Lloc d’aturada
Terminador
Cadena complementària
Acabament i alliberament de la polimerasa i de la cadena d’ARN acabada 5’
El factor σ s’associa de nou a l’ARN-polimerasa
La transcripció s’inicia quan una subunitat de l’ARN-polimerasa, el factor σ, reconeix en l’ADN un promotor o seqüència d’inici de la transcripció. Aleshores s’hi uneix amb fermesa i, mentre es desplaça al llarg del gen, catalitza la unió dels ribonucleòtids complementaris. La cadena d’ARN va creixent fins que troba un terminador o seqüència d’aturada. Aleshores l’ARNpolimerasa s’associa de nou al factor σ –que s’havia desprès poc després de començar la síntesi– i pot reiniciar el procés.
Regió codificadora
Regions codificadores (exons) Regions no codificadores (introns)
Gen eucariota
Comparació entre els gens dels bacteris i els dels organismes eucariotes. En el primer cas (a) hi ha una seqüència contínua de nucleòtids que codifica per a una proteïna. En canvi, en els eucariotes (b) la seqüència codificadora sovint està interrompuda per introns o seqüències no codificadores.
Maduració
La molècula d’ARN que es forma com a resultat immediat de la transcripció és un «transcrit primari». En els bacteris aquesta molècula és ja l’ARN missatger (ARNm); és a dir, és traduïda directament a proteïnes, a vegades quan encara no s’ha acabat de sintetitzar. En els eucariotes, en canvi, abans de convertir-se en ARNr, ARNt o ARNm i traduir-se, en aquest cas, en proteïna, la molècula del transcrit primari ha de «madurar», és a dir, ha d’experimentar alguns canvis moleculars.
El transcrit primari, que una vegada madur donarà lloc als ARNm dels eucariotes, s’anomena ARN nuclear heterogeni o ARNnh. La maduració d’aquest transcrit, que té lloc al nucli cel·lular, implica tres canvis principals: a) la incorporació d’un «casquet» en l’extrem 5’ (un nucleòtid de guanina metilat, que s’incorpora per mitjà d’un enllaç 5’→ 5’); b) l’addició d’una «cua» de poli-A (que conté de 100 a 250residus d’adenilat) que, com el casquet, atorga estabilitat a la molècula; c)un procés de tall i unió (splicing) que elimina seqüències internes o introns de l’ARN que no seran finalment traduïts a seqüències proteiques i entronca els fragments restants o exons, els únics que apareixen en el producte final o ARNm, que és exportat al citoplasma. Els introns són eliminats per uns enzims singulars formats de proteïna i ARN, les ribonucleoproteïnes nuclears petites o snRNP, que reconeixen determinades seqüències de nucleòtids en les proximitats dels extrems de l’intró, similars en la major part dels casos (seqüències consens).
Per la seva part, els transcrits primaris dels ARN ribosòmics (ARNr) i ARN de transferència (ARNt), també experimenten un procés de maduració, en bacteris i en eucariotes: eliminació de seqüències internes, escurçaments, metilacions i altres modificacions de les bases, etc.
L’any 1977 fou possible formar molècules híbrides d’ARNm i un filament del corresponent ADN; això demostrà l’existència dels introns en els gens dels eucariotes, un dels descobriments més sorprenents de la biologia molecular. Així doncs, mentre en els procariotes la norma és la colinealitat o correspondència lineal (contínua) entre els aminoàcids d’una proteïna i la seqüència corresponent dels nucleòtids en la molècula d’ADN, en els eucariotes aquesta colinealitat en molts casos no existeix.
El nombre d’introns per gen és variable. Així, per exemple, mentre que el gen de la β-globina en té 2, el de l’ovoalbúmina en té 7.
Estructura del gen Gen de l’ovoalbúmina (7700 parelles de nucleòtids)
Exons L 12 34 56 7
A BCD EF G
Longitud, en parells de nucleòtids, dels exons 47 18551129118143156 1043
Longitud, en parells de nucleòtids, dels introns
Heterodúplex ADN-ARNm
251 400 450 1600 600 950 1600
Fins i tot, en algun cas, aquest nombre pot arribar a 50. Sovint, és més gran la longitud total dels introns que no la de les seqüències codificadores de proteïnes. Així, per exemple, mentre que el gen de l’ovoalbúmina conté un total de 7700 parells de bases, la suma total dels seus exons té només una longitud d’uns 1800 parells. De fet, molts gens de mamífers tenen més introns que exons. Mentre que prop d’un 75% dels gens dels mamífers presenten introns, aquest percentatge baixa a només entre un 10% i un 20% en els eucariotes unicel·lulars.
En l’actualitat s’accepta que l’existència dels introns té un profund significat biològic, ja que afavoreix la recombinació entre exons. El procés de maduració de l’ARN és d’una gran importància per a la regulació de l’expressió dels gens. Segons l’estat de desenvolupament de l’organisme o d’un teixit cel·lular, a partir d’un mateix transcrit d’ARN es poden formar ARN missatgers (ARNm) diferents i, per tant, proteïnes diferents. En alguns casos, els diferents exons d’un gen codifiquen dominis estructurals i funcionals diferents del seu producte proteic, cosa especialment aparent en els gens que codifiquen per als anticossos.
A més, l’existència dels introns sembla tenir un clar significat evolutiu: probablement ha facilitat l’aparició de noves proteïnes útils, un fet que compensa amb escreix el manteniment de tant d’ADN no codificador com hi ha en els genomes dels organismes superiors. Molts biòlegs pensen que les cèl·lules primitives tenien exons i que els bacteris els han perdut pel fet d’haver-se adaptat a un tipus de vida en la qual prima la immediatesa de la replicació i l’expressió ràpida del material genètic, poc compatibles amb un genoma gran.
Els introns determinen la formació de bucles en les molècules d’ADN heterodúplex, fet que en va fer possible el descobriment.
CCCTGTGGAGCCACACCCTAGGGTTGGCCA
ATCTACTCCCAGGAGCAGGGAGGGCAGGAG
CCAGGGCTGGGCATAAAAGTCAGGGCAGAG
CCATCTATTGCTTACATTTGCTTCTGACAC
AACTGTGTTCACTAGCAACTCAAACAGACA CCATGGTGCACCTGACTCCTGAGGAGAAGT CTGCCGTTACTGCCCTGTGGGGCAAGGTGA ACGTGGATGAAGTTGGTGGTGAGGCCCTGG GCAGGTTGGTATCAAGGTTACAAGACAGGT TTAAGGAGACCAATAGAAACTGGGCATGTG GAGACAGAGAAGACTCTTGGGTTTCTGATA GGCACTGACTCTCTCTGCCTATTGGTCTAT TTTCCCACCCTTAGGCTGCTGGTGGTCTAC CCTTGGACCCAGAGGTTCTTTGAGTCCTTT GGGGATCTGTCCACTCCTGATGCTGTTATG GGCAACCCTAAGGTGAAGGCTCATGGCAAG AAAGTGCTCGGTGCCTTTAGTGATGGCCTG GCTCACCTGGACAACCTCAAGGGCACCTTT GCCACACTGAGTGAGCTGCACTGTGACAAG CTGCACGTGGATCCTGAGAACTTCAGGGTG AGTCTATGGGACCCTTGATGTTTTCTTTCC CCTTCTTTTCTATGGTTAAGTTCATGTCAT AGGAAGGGGAGAAGTAACAGGGTACAGTTT AGAATGGGAAACAGACGAATGATTGCATCA GTGTGGAAGTCTCAGGATCGTTTTAGTTTC TTTTATTTGCTGTTCATAACAATTGTTTTC TTTTGTTTAATTCTTGCTTTCTTTTTTTTT CTTCTCCGCAATTTTTACTATTATACTTAA TGCCTTAACATTGTGTATAACAAAAGGAAA TATCTCTGAGATACATTAAGTAACTTAAAA AAAAACTTTACACAGTCTGCCTAGTACATT ACTATTTGGAATATATGTGTGCTTATTTGC ATATTCATAATCTCCCTACTTTATTTTCTT TTATTTTTAATTGATACATAATCATTATAC ATATTTATGGGTTAAAGTGTAATGTTTTAA TATGTGTACACATATTGACCAAATCAGGGT AATTTTGCATTTGTAATTTTAAAAAATGCT TTCTTCTTTTAATATACTTTTTTGTTTATC TTATTTCTAATACTTTCCCTAATCTCTTTC TTTCAGGGCAATAATGATACAATGTATCAT GCCTCTTTGCACCATTCTAAAGAATAACAG TGATAATTTCTGGGTTAAGGCAATAGCAAT ATTTCTGCATATAAATATTTCTGCATATAA ATTGTAACTGATGTAAGAGGTTTCATATTG CTAATAGCAGCTACAATCCAGCTACCATTC TGCTTTTATTTTATGGTTGGGATAAGGCTG GATTATTCTGAGTCCAAGCTAGGCCCTTTT GCTAATCATGTTCATACCTCTTATCTTCCT CCCACAGCTCCTGGGCAACGTGCTGGTCTG TGTGCTGGCCCATCACTTTGGCAAAGAATT CACCCCACCAGTGCAGGCTGCCTATCAGAA AGTGGTGGCTGGTGTGGCTAATGCCCTGGC CCACAAGTATCACTAAGCTCGCTTTCTTGC TGTCCAATTTCTATTAAAGGTTCCTTTGTT CCCTAAGTCCAACTACTAAACTGGGGGATA TTATGAAGGGCCTTGAGCATCTGGATTCTG CCTAATAAAAAACATTTATTTTCATTGCAA TGATGTATTTAAATTATTTCTGAATATTTT ACTAAAAAGGGAATGTGGGAGGTCAGTGCA TTTAAAACATAAAGAAATGATGAGCTGTTC AAACCTTGGGAAAATACACTATATCTTAAA CTCCATGAAAGAAGGTGAGGCTGCAACCAG CTAATGCACATTGGCAACAGCCCCTGATGC
Seqüència de bases del gen de la β-globina humana (es llegeix d’esquerra a dreta com un text normal). Les parts ressaltades són els exons; la resta són introns o seqüències no codificants.
Les diferents etapes de l’expressió gènica en el cas del gen de la β-globina humana.
El gen per a la β-globina humana és un segment del cromosoma 16
El transcrit primari és una còpia d’una de les cadenes del gen
Addició casquet inicial
1604 parells de nucleòtids
1604 nucleòtids
Intró (suprimir 130 nucleòtids)
Intró (suprimir 848 nucleòtids)
Addició cua de poli-A
Del gen a la proteïna en els eucariotes (a) i en els procariotes (b).
Casquet d’ARN Exons a
Maduració
ARNm
626 nucleòtids
438 nucleòtids
Síntesi proteica «principi» (AUG) «fi» (UAA)
Traducció, d’acord amb el codi genètic
Supressió de metionina
Maduració del pèptid β-globina
147 aminoàcids
146 aminoàcids
(cua de poli-A)
La traducció és un fenomen que consisteix en la síntesi d’una proteïna a partir de la informació –seqüència de nucleòtids– de l’ARN missatger (ARNm), i té lloc al citoplasma amb la participació activa dels ribosomes. En aquest procés actuen, com a «adaptadors», els ARN de transferència o ARNt, dels quals n’hi ha com a mínim un per cadascun dels 20 aminoàcids. El terme traducció fa referència precisament a un cert canvi de llenguatge. En efecte, la informació genètica de l’ADN o de l’ARNm està continguda en un alfabet de quatre lletres (els nucleòtids), i aquesta mateixa informació ha de ser traduïda a la seqüència d’aminoàcids, és a dir, a un altre «idioma» amb un alfabet de vint lletres.
3.1. El codi genètic
El codi genètic és el conjunt d’equivalències entre els codons o triplets de nucleòtids de l’ARN missatger i els corresponents aminoàcids de les proteïnes. Les seves principals característiques són les següents:
a) És pràcticament universal. En tots els organismes, des dels virus fins als grups d’eucariotes, els mateixos triplets tenen sempre el mateix significat (les principals excepcions es donen en l’ADN mitocondrial).
b) Presenta redundància (a vegades es diu que és «degenerat», usant una paraula manllevada de la mecànica quàntica). Per a la major part d’aminoàcids, hi ha triplets sinònims (amb el mateix significat). De les tres bases, la tercera és la menys important. En aquesta posició, U i C són sempre equivalents; A i G, a vegades.
c) La «degeneració» és deguda al fet del balanceig. Un mateix ARNt pot aparellar-se amb diversos codons que només difereixen per la tercera base, perquè a aquest nivell l’aparellament és dèbil.
d) Malgrat la redundància, el codi no és pas ambigu; cada triplet significa només un aminoàcid.
e) Dels 64 codons possibles, 61 determinen aminoàcids. El codó AUG, que determina metionina, és al mateix temps un codó iniciador, senyal d’inici de la síntesi proteica. Els altres tres (UAA, UAG i UGA) són codons de terminació o de parada, que l’aturen.
Els ARN de transferència o ARNt estan formats per una seqüència d’uns 80 nucleòtids (c). Alguns segments curts d’aquesta seqüència són complementaris, per la qual cosa s’aparellen i la molècula adopta una configuració bidimensional en fulla de trèvol (a), si bé l’estructura tridimensional (b) recorda la lletra L. L’anticodó és la seqüència de 3 nucleòtids capaç d’aparellar-se amb el codó corresponent de l’ARNm, mentre que l’aminoàcid s’uneix a l’extrem 3’ lliure. En el dibuix s’ha representat un dels ARNt de l’aminoàcid fenilalanina (Ψ i D, respectivament pseudopurina i dihidroxiuridina, són bases derivades de l’uracil).
Segona lletra
UUU
UUC
UUA
UUG UCU UCC UCA UCG UAU
UAC UAA UAG UGU UGC UGA UGG
CUU
CUC
CUA
CUG CCU CCC CCA CCG CAU CAC CAA CAG CGU CGC CGA CGG
AUU
AUC
AUA
AUG ACU ACC ACA ACG AAU AAC AAA AAG AGU AGC AGA AGG
GUU
GUC
GUA
GUG GCU GCC GCA GCG GAU GAC GAA GAG GGU GGC GGA GGG Phe
El codi genètic és el quadre d’equivalències entre els codons o triplets de bases de l’ARNm i els aminoàcids que constitueixen les proteïnes.
Per mitjà d’aquest codi, el llenguatge de quatre lletres de l’ADN, agafades de tres en tres, es tradueix en el llenguatge de vint lletres dels polipèptids (seqüència d’aminoàcids).
Els ribosomes són la maquinària cel·lular per a la síntesi de proteïnes. Estan formats per dues subunitats amb un total d’unes vuitanta proteïnes i 4 molècules d’ARN, el qual sembla tenir funcions catalítiques. Un ribosoma té tres llocs d’unió per als ARNt (E, P i A) i un per a l’ARNm.
f) Els triplets estan juxtaposats i la seva lectura es fa sense pauses. Mentre que en els eucariotes pot no haver-hi encavallament, en els bacteris la síntesi proteica pot iniciar-se a partir de més d’una seqüència AUG de l’interior d’un mateix ARN missatger. És a dir, a partir d’un únic ARNm se sintetitzen proteïnes diferents.
La traducció de l’ARN missatger, que és molt complexa, opera sempre en direcció 5’ → 3’. Habitualment, un mateix ARNm és traduït per més d’un ribosoma (la qual cosa origina unes figures semblants a cadenes de rosari, els poliribosomes o polisomes, observables al microscopi). En el procés, que dura d’uns segons a uns minuts, es consumeix més energia (en forma de nucleòtids trifosfats) que en qualsevol altra activitat biosintètica de la cèl·lula.
Unes 50 proteïnes + 3 molècules d’ARN Unes 30 proteïnes + 1 molècula d’ARN
Subunitat gran
Subunitat petita
Centre P
Subunitat gran Unes 80 proteïnes + 4 molècules d’ARN
Centre E
Subunitat petita
Ribosoma complet
Centre A
Lloc d’unió amb l’ARNm
En la traducció, s’hi distingeixen les etapes següents:
– Activació dels aminoàcids o fase prèvia. Els diferents aminoàcids s’uneixen a l’extrem 3’ del seu ARNt específic per formar els respectius aminoacil-ARNt. Aquest és un procés específic de cada aminoàcid, catalitzat per l’enzim aminoacil-ARNt-sintetasa, en el qual es consumeix ATP.
Aminoacil-ARNt sintetasa específica del triptòfan
ARNt específic del triptòfan (ARNtTrp)
Unió del triptòfan a l’ARNtTrp
L’anticodó de l’ARNtTrp s’uneix al codó UGG
Aparellament de bases codó-anticodó
Codó triptòfan
– Iniciació. La traducció d’un ARNm s’inicia amb el codó AUG o codó d’inici. Els passos són els següents: l’ARNt de la metionina s’uneix a la subunitat ribosòmica menor. Després, aquesta subunitat s’uneix a l’extrem 5’ de l’ARNm. A continuació, la subunitat menor es desplaça, en sentit 5’ → 3’, al llarg de l’ARN fins que troba el primer AUG. Aleshores, unes proteïnes –dites factors d’iniciació– es desprenen de la subunitat ribosomal petita, la qual pot així unir-se a la subunitat gran. Un cop el ribosoma és complet i l’ARNt de la metionina s’ha unit al centre P comença la síntesi pròpiament dita, amb la unió del següent ARNt amb el corresponent aminoàcid.
–Elongació. Aquest segon ARNt no és un ARNt qualsevol, sinó un ARNt que presenta un anticodó complementari del codó que hi ha a continuació del codó AUG en la molècula d’ARNm. Carregat amb el seu aminoàcid, aquell ARNt s’uneix al centre A del ribosoma. Els dos aminoàcids, ara propers, s’uneixen mitjançant un enllaç peptídic en una reacció (entre el grup COOH del primer i el NH2 del segon) catalitzada per l’enzim peptidiltransferasa, que forma part del ribosoma.
Aquesta reacció, que és l’esdeveniment crucial de la síntesi proteica, és acompanyada per un desplaçament relatiu de la subunitat petita (unida a l’ARNm) sobre la subunitat gran del ribosoma, que ocasiona el desplaçament dels dos ARNt (fins ara units a P i A) cap als centres E i P, respectivament.
L’enzim aminoacil-ARNt acobla un aminoàcid determinat (en aquest cas el triptòfan) al seu ARNt corresponent. D’aquesta manera, l’ARNt s’uneix a la seqüència de nucleòtids apropiada i incorpora a la posició adequada el seu aminoàcid corresponent.
Cadena polipeptídica en creixement
ARNt d’iniciació
Subunitat petita del ribosoma, amb factors d’iniciació units
Unió a l’ARNm
ARNm
L’ARNt d’iniciació recorre l’ARN i busca el primer AUG
Els factors d’iniciació es dissocien S’hi uneix la subunitat gran
Nou enllaç peptídic
Unió d’un factor d’alliberament a un codó de terminació
Unió de l’aminoacil-ARNt Es forma el primer enllaç peptídic
Nou enllaç peptídic
Terminació: fi de la síntesi i dissociació
Després, la subunitat petita es desplaça (en sentit 5’ → 3’) tres nucleòtids al llarg de l’ARNm, de manera que torna a estar encarada amb la subunitat gran. Aquest desplaçament provoca l’alliberament del primer ARNt que ocupava el centre E i que ja s’havia desenganxat del seu aminoàcid (el qual ara forma part de la cadena peptídica en creixement).
Sobre el centre A, ara novament lliure, s’uneix un tercer ARNt i les tres etapes del procés es repeteixen una vegada i una altra: a) unió d’un nou ARNt carregat i formació de l’enllaç peptídic; b) desplaçament de la subunitat petita sobre l’ARNm; c) recomposició del ribosoma i alliberament de l’ARNt descarregat. El resultat és el creixement de la cadena peptídica.
–Acabament de la síntesi. Els codons de parada (UAA, UAG i UGA) no corresponen a cap proteïna i no són reconeguts per cap ARNt, de manera que quan el ribosoma en troba un la síntesi s’atura. A falta de l’ARNt corresponent, unes proteïnes denominades factors d’alliberament s’uneixen al centre A. Aquest fet determina la interrupció de la síntesi i l’alliberament, separadament, de l’ARNt i de la cadena d’aminoàcids. Per la seva part, el ribosoma es dissocia i resta de nou inactiu. Sovint, els ARNm presenten més d’un codó de parada, gairebé seguits, com una mena de mecanisme de seguretat.
La cadena peptídica, abans de convertir-se en proteïna funcional, experimenta un seguit de transformacions o procés de maduració que pot començar quan encara s’està produint la síntesi en el ribosoma i que, en el cas dels eucariotes, pot perllongar-se quan la proteïna de secreció es troba ja a l’interior del reticle endoplasmàtic o de l’aparell de Golgi.
Aquestes transformacions poden ser, entre altres: a) la modificació dels extrems amino o carboxil; b) l’eliminació d’algunes seqüències (necessàries per passar, per exemple, de prohormones a hormones o de zimogens a enzims); c) la modificació de les cadenes laterals dels aminoàcids per carboxilació, metilació, fosforilació, etc.; d) l’engalzament dels monòmers per formar els polímers funcionals (dímers, trímers…); e) la unió amb el grup prostètic, etc.
Totes aquestes transformacions tenen lloc, sovint, simultàniament al plegament tridimensional de la cadena peptídica, a causa de la formació dels enllaços intramoleculars entre aminoàcids allunyats (ponts disulfur, ponts d’hidrogen, etc.). Aquests canvis atorguen a les seqüències peptídiques les estructures secundària, terciària i quaternària típiques de la configuració nativa de les proteïnes i les fan funcionals. Unes proteïnes especials, dites xaperonines, faciliten el procés de plegament de les cadenes peptídiques.
La síntesi de proteïnes a partir de la seqüència inscrita en l’ARNm té lloc en els ribosomes del citoplasma cel·lular, en un procés en el qual participen activament els ARN de transferència (ARNt). En els bacteris, els ribosomes poden iniciar la síntesi de proteïna a partir de codons AUG localitzats a l’interior de l’ARNm. D’aquesta manera, se sintetitzen proteïnes diverses a partir d’un sol ARNm.
Severo Ochoa (Luarca, Astúries 1905Madrid 1993) es doctorà en medicina a la Universitat de Madrid i amplià els estudis a Glasgow, Heidelberg, Londres i Oxford. L’any 1941 marxà als Estats Units d’Amèrica, on va descobrir l’enzim fosforilasa polinucleòtid, que permeté sintetitzar els polinucleòtids. L’any 1959 fou guardonat, juntament amb Arthur Kornberg, amb el premi Nobel de medicina i fisiologia per les investigacions sobre els àcids nucleics que feren possible la síntesi de l’ARN in vitro.
Mendel descobrí com s’hereten els caràcters hereditaris sense conèixer els gens. Més tard aquests foren identificats amb fragments de cromosoma. Des del punt de vista pràctic, continua sent vàlid el sentit clàssic que identifica el gen amb algun tret observable en el fenotip. Així, parlem de tants gens com variants hereditàries hi reconeixem: el gen per als ulls vermells i el gen per als ulls blancs de la drosòfila; el del color groc i el del color verd dels pèsols, etc.
L’any 1909, el danès Wilhelm Johannsen introduí el terme gen (‘el que dóna origen a’) per designar els «factors de l’herència» descoberts per Mendel. Durant molt de temps, es tingué una idea física dels gens com si fossin fragments o «perles indivisibles d’un collaret» (el cromosoma). A mitjan segle XX sorgí l’evidència que els gens controlen l’estructura de les proteïnes i es féu cèlebre l’expressió «un gen, un enzim».
Tanmateix, ben aviat començà a sorgir l’evidència de la divisibilitat del gen, que revolucionà la genètica de la mateixa manera que, amb anterioritat, el descobriment de la divisibilitat de l’àtom havia revolucionat la física. Es féu evident que la unitat genètica bàsica és diferent i depèn de la funció considerada (recombinació, mutació, etc.) i, a poc a poc, s’anà imposant la concepció dels gens com a seqüències de nucleòtids de l’ADN.
Qualsevol aproximació al concepte de gen ha de tenir en compte tots els descobriments recents, com per exemple:
– l’existència dels gens saltadors;
– el fet que el material genètic d’alguns virus és l’ARN; – el fet que alguns gens no codifiquen per a proteïnes sinó per a molècules d’ARN;
– la derivació de proteïnes diferents a partir d’una mateixa seqüència de nucleòtids a causa de l’existència dels introns i de la maduració alternativa de l’ARN.
La definició moderna de gen –si més no la dels denominats gens estructurals que s’identifiquen en funció del seu producte– el fa igual a una seqüència d’ADN (ARN, en el cas dels retrovirus), que és transcrita com una unitat única (amb independència de la seva localització i continuïtat física) i que codifica un conjunt d’ARN o cadena polipeptídica relacionada. Encara més senzill: un gen és una seqüència transcrita de nucleòtids que codifica un producte (ARN o proteïna) amb una funció cel·lular específica. Ara bé, algunes d’aquestes seqüències tenen funcions únicament reguladores dels altres gens.
Transcriptasa inversa i elements genètics mòbils
Com s’ho fan els virus d’ARN –com ara el VIH de la sida– per integrar la seva informació genètica en la de la cèl·lula? Per mitjà de la síntesi d’una còpia en ADN de l’ARN víric. L’any 1970, Howard Temin, que hi anava al darrere des de feia alguns anys, i David Baltimore van descobrir l’enzim transcriptasa inversa (o retrotranscriptasa), que catalitza la síntesi esmentada.
El descobriment de Temin i Baltimore és molt important (per aquest motiu van rebre el premi Nobel de medicina del 1975), perquè representa una excepció al caràcter direccional del flux de la informació biològica (ADN → ARN → proteïnes). Durant un temps, es va creure que la transcriptasa inversa era exclusiva de determinats virus d’ARN (retrovirus). Ara sabem que no. L’activació dels gens saltadors hi està molt relacionada.
Durant la dècada de 1940, Barbara McClintock va descobrir en el blat de moro l’existència de gens que s’activaven o s’inactivaven (talment com un llum que s’encén o s’apaga) en funció d’un gen que, en saltar d’un punt a l’altre del genoma, influïa sobre els gens veïns. Tanmateix, el descobriment d’aquests gens saltadors era massa revolucionari per a l’època i gairebé no fou reconegut (Barbara McClintock no va rebre el premi Nobel de medicina pel seu descobriment fins l’any 1983).
Avui dia, sabem que els elements genètics mòbils, elements transponibles o transposons, són habituals en moltes espècies. Es tracta de segments d’ADN que poden ser transferits, és a dir, inserits en una nova porció del cromosoma. Per fer-ho, necessiten un enzim denominat transposasa. Els transposons són propis tant dels bacteris com dels eucariotes. En aquests últims hi ha la classe especial dels retrotransposons, els quals no es desplacen en forma d’ADN, sinó per mitjà d’un intermediari d’ARN. Totes les cèl·lules en tenen múltiples còpies, si bé només solen transferir-se molt de tant en tant. En el genoma humà també hi ha abundants seqüències genètiques mòbils, especialment dues: l’element L1, tan repetit que constitueix prop d’un 4% del genoma humà, i la seqüència Alu, de només uns 300 parells de bases, però tan repetida (més de 500000 còpies) que representa prop d’un 5% de l’ADN total.
Partícula en formació
Càpsida incompleta
El paper de la transcriptasa inversa en la infecció causada per un retrovirus.
Dissolució de la coberta
Fixació
Partícula vírica d’ARN ARN
Transcriptasa inversa
ADN Traducció de les proteïnes víriques
ADN de filament doble
Partícula vírica completa
Nucleoide incomplet
Càpsida i proteïnes nucleoides
Transcriptasa inversa ARN-polimerasa
Transcriptasa inversa
ADN de filament doble integrat en el cromosoma de l’hoste
Transcripció
Embolcall nuclear
Els virus són com gens autònoms protegits per un embolcall de proteïnes. La seva mobilitat els ha permès tenir un paper important en l’evolució de les espècies.
En alguns casos, la similitud dels transposons amb el funcionament dels retrovirus és molt gran. No tan sols alguns dels seus gens són força semblants, sinó que hi ha transposicions en què, de fet, hi intervé una transcriptasa inversa. En els seus salts, l’element mòbil pot malmetre, reordenar o arrossegar seqüències properes de l’ADN, de manera que la seva influència, favorable, sobre l’evolució dels genomes ha estat segurament molt gran. Des d’aquest punt de vista, un plasmidi –molècula d’àcid nucleic que es replica de manera independent del cromosoma– és un transposó amb capacitat de replicació autònoma. Tot fa pensar que els virus deriven d’aquests elements genètics mòbils (transposons i plasmidis) dels quals serien els ancestres. Probablement, els primers virus van aparèixer quan algun plasmidi d’ARN va adquirir un gen que codifica per a una proteïna protectora. Protegits per la seva càpsida, els virus han aconseguit una capacitat única: transferir seqüències d’àcids nucleics entre espècies diferents (aquest procés de transducció s’utilitza actualment en enginyeria genètica per traslladar gens d’una cèl·lula a una altra).
10.6. Copia la taula següent, relatiu a una cadena d’ADN humà que es transcriu i als productes relacionats amb aquesta transcripció, i completa’l.
10.7. En la replicació de l’ADN, cada bri de l’ADN inicial actua com a motlle per a la síntesi d’un bri complementari. Quins són els tres mecanismes de replicació teòricament possibles? Quin dels tres s’adiu amb la replicació de l’ADN? En relació amb l’experiment de Meselson i Stahl, quins haurien estat els resultats de la sedimentació al cap de 0, 1, 2 i 3 generacions? Dibuixa’n els gràfics relatius.
10.8. Les ADN-polimerases catalitzen la incorporació de desoxiribonucleòtids monofosfats al bri d’ADN en formació, mentre que les peces elementals disponibles són els nucleòsids trifosfats. Com s’explica, aquest fet?
10.9. Respon a les preguntes següents:
a)Quan es formen, els segments d’Okazaki? Per què es formen?
b)Com es forma l’iniciador d’aquests segments?
c)Com s’elimina després aquest iniciador?
d)Com s’uneixen els fragments restants?
10.10. Fixa’t en els conceptes següents i explica si hi ha cap diferència entre cada una de les parelles: a) gen / factor hereditari; b) caràcter universal del codi / caràcter no ambigu del codi; c) replicació de l’ADN / síntesi de l’ADN; d) replicació conservadora / replicació semiconservadora; e) replicació unidireccional / replicació bidireccional.
10.11. Tal com s’explica en el text, J. H. Taylor i els seus col·legues van experimentar amb plantetes de lliri després d’haver-les cultivat amb [3H]timidina. En van agafar unes quantes cèl·lules i en van fer una autoradiografia (mostra 1) per mirar-ne els cromosomes (l’isòtop radioactiu revela la seva presència). Van deixar que aquestes cèl·lules es reproduïssin una vegada (F1) i encara una segona vegada (F2). Quina interpretació es pot fer d’aquests resultats? Per què la [3H]timidina es reparteix d’aquesta manera?
10.12. Mitjançant tècniques especials (denominades d’hibridació), és possible obtenir, des de la dècada de 1970, molècules bicatenàries híbrides formades per fragments de l’ADN i l’ARNm d’una mateixa espècie bacteriana. Quines conclusions es poden extreure d’aquest fet en relació amb el procés de la transcripció i amb l’arquitectura molecular de l’ADN i l’ARN?
10.13. Quines són les característiques estructurals comunes dels ARNt? Quines són les característiques estructurals que els diferencien?
10.14. Quina funció tenen els codons UAA, UAG i UGA? ¿Hi ha ARNt que els reconeixen? Com són reconeguts?
10.15. Defineix els termes intró, colinealitat, anticodó, ARN-polimerasa i peptidiltransferasa
10.16. Quin és el percentatge de guanina d’un ADN vegetal amb un contingut d’adenina del 33%? Per què? Si el codó de l’ARN missatger que codifica l’aminoàcid lisina és 5’AAG3’, quina és la seqüència de bases de l’anticodó de l’ARNt corresponent? Quin és l’extrem 5’ i quin el 3’? Quina és la funció dels codons que no codifiquen cap aminoàcid?
10.17. Determina, per als anticodons 3’UUA5’, 3’UCU5’, 3’AAU5’ i 3’ACU5’, les qüestions següents:
a)el codó corresponent de l’ARNm, tenint en compte els extrems 5’ i 3’;
b)la seqüència de 3 nucleòtids de la cadena d’ADN que es transcriu; c)la seqüència de 3 nucleòtids de la cadena d’ADN complementària; d)l’aminoàcid que correspon a cada codó.
Generació P
2 cromàtides
Generació F1
Generació F2
Zona radioactiva del cromosoma
Zona sense radioactivitat
L’experiment de Taylor.
Creixement en medi mínim
Soca mare
Mutant 1
Mutant 2
La morfologia pròpia del gat siamès és el resultat d’una mutació puntual en el seu material genètic.
10.18. Explica la diferència entre virus, virió, transposó i plasmidi
10.19. Per tal d’obtenir nous mutants s’exposen cultius del bacteri Escherichia coli a l’acció mutagènica dels raigs X. Després d’exposicions repetides, s’obtenen alguns mutants que no creixen en un medi mínim amb glucosa i sals minerals, medi en el qual en canvi creixen les E.coli normals. Per poder cultivar aquests mutants cal afegir al medi mínim alguns aminoàcids, o bé algunes bases nitrogenades. Observa la taula que hi ha a continuació i resol les qüestions següents:
a)Digues el nom de dos o tres elements químics que han de formar part necessàriament del medi mínim.
b) On es manifestarà de manera més immediata l’efecte d’una mutació: en un bacteri o en una cèl·lula humana? Per què?
c)Formula hipòtesis bioquímiques per explicar per què els mutants1 i 2 no creixen en el medi mínim i necessiten una aportació d’alguns aminoàcids o de bases nitrogenades.
d)Explica com s’hauria de dissenyar un experiment que corrobori les teves hipòtesis.
Creixement en medi suplementat amb aminoàcids
Creixement en medi suplementat amb bases nitrogenades
Les mutacions –canvis en els gens o en els cromosomes– són alteracions del material hereditari que es produeixen per un error en els mecanismes moleculars de replicació o de reparació de l’ADN cel·lular, o bé per disfuncions en la repartició dels cromosomes durant la divisió cel·lular.
Les mutacions són fets accidentals (excepcions a una regularitat), aleatoris i, per tant, de caràcter no direccional. Tanmateix, constitueixen –malgrat que moltes tinguin un efecte deleteri– la base de la diversitat del material hereditari que ha permès l’evolució per selecció natural. Algunes mutacions, com ara les que alguns autors denominen macromutacions, produeixen canvis notables i, per això, tenen una gran importància evolutiva.
Les mutacions es produeixen de manera espontània, tot i que alguns factors o agents mutàgens n’augmenten l’aparició, especialment les radiacions d’alta energia, com ara els raigs gamma i els raigs X, o la
llum ultraviolada i diverses substàncies químiques, com ara el gas mostassa, el peròxid d’hidrogen i l’àcid nitrós, els efectes mutagènics dels quals són ben coneguts (i per això han estat usats com a armes químiques de destrucció massiva).
Els mecanismes enzimàtics de lectura i correcció de proves durant la replicació de l’ADN fan que, tal com hem dit, en els mamífers només una de cada 109 bases es copiï de manera incorrecta. Si tenim en compte tots els diferents tipus de mutacions existents, la freqüència de mutació calculada per a una diversitat d’organismes és, de mitjana, de l’ordre d’1 entre 100000 i 1 entre 10000000(10–5 –10–7). S’estima que les mutacions letals contingudes en un cromosoma humà sencer poden afectar ben bé un de cada 100 o 1000 gàmetes. Al llarg de la seva vida, una persona adulta acumula, segurament, entre 10 i 100 mutacions de parells de bases en les seves cèl·lules somàtiques.
Mentre que les mutacions de les cèl·lules somàtiques no tenen transcendència evolutiva –encara que poden induir la formació de tumors i malformacions–, les mutacions en les cèl·lules germinals (òvuls i espermatozoides) són molt importants, perquè totes les cèl·lules que després de la fecundació resulten de la divisió del zigot en seran portadores.
Hi ha dos tipus de mutacions:
– Les mutacions gèniques o puntuals, que afecten un o més parells de bases de l’ADN.
– Les mutacions o aberracions cromosòmiques, que afecten fragments de cromosoma, cromosomes sencers o tot el seu conjunt. Avegades, les mutacions que afecten el nombre de cromosomes (no tan sols la forma) es classifiquen en un tercer grup a part: el de les mutacions genòmiques. Les mutacions cromosòmiques es poden observar al microscopi.
Les mutacions gèniques són degudes a errors en la replicació o la reparació de l’ADN i a vegades són molt puntuals. Efectivament, algunes mutacions són simples substitucions de parells de bases (que canvien el sentit d’un triplet, però no el sistema de lectura). Entre aquestes hi ha les transicions (substitució d’una base púrica o pirimidínica per una altra de la mateixa família) i les transversions (substitució d’una purina per una pirimidina o viceversa).
Les més freqüents (80% del total de les mutacions gèniques) són les que per addició o deleció (pèrdua) de parells de bases produeixen un corriment del sistema de lectura –que opera per triplets de bases–. Aquest desplaçament de la pauta de lectura acostuma a causar canvis dràstics de la proteïna codificada.
Les mutacions són fets accidentals, aleatoris i no direccionals. Tanmateix, la freqüència amb què succeeixen es pot veure notablement incrementada pels denominats agents mutàgens, com ara les radiacions ionitzants, la llum ultraviolada o diverses substàncies químiques.
La llum ultraviolada és un poderós agent mutagen.
Tipus de mutació
El text genètic està escrit amb «paraules» de tres lletres. També hem escrit amb paraules de tres lletres la següent nota de comanda de dos frankfurts, ja que volem menjar, mentre estudiem, una salsitxa a l’estil americà, amb sal i col fermentada, i una altra només amb sal i sense col. A través d’aquesta nota, es pot veure la gravetat dels tipus de mutacions sobre el significat del missatge.
Lloc de la mutació
Missatge original ELS DOS AMB SAL MES UNA AMB COL
Resultat
Substitució d’una lletra ELS DOS AMB SAC MES UNA AMB COL Canvi de sentit
Substitució d’una lletra ELS DOS AMB SAF MES UNA AMB COL Disminució de sentit
Inserció d’una lletra ELS DOS AMB SAF LME SUN AAM BCO L
Addició d’un fragment ELS DOS AMB SAF TGH MLM ESU NAA MBC OL
Deleció d’una lletra ELS DOS AMB SAM ESU NAA MBC OL
Deleció d’un fragment ELS DOS AMB SA
4.2. Mutacions cromosòmiques
Alteració total del sentit a partir del punt de mutació
Alteració total del sentit a partir del punt de mutació
Alteració total del sentit a partir del punt de mutació
Pèrdua greu d’informació
Les mutacions cromosòmiques són mutacions que impliquen una reordenació del material genètic ja existent, més que no pas nous canvis en aquest material. Aquest tipus de mutacions afecten fragments de cromosomes, cromosomes sencers o, fins i tot, el conjunt del genoma i es produeixen durant la divisió cel·lular, especialment en la meiosi. Algunes afecten l’estructura dels cromosomes; d’altres, el nombre.
Canvis en l’estructura dels cromosomes
a) Per minva o addició de fragments:
– Delecions. Són la pèrdua d’un fragment de cromosoma. Sovint són letals.
– Duplicacions. Suposen la presència repetida d’un fragment de la dotació cromosòmica (sobre el cromosoma original o sobre un altre). Sovint han tingut una gran importància evolutiva, ja que, per mutació posterior, permeten la diversificació del material hereditari. De fet,
Inversió pericèntrica
Inversió paracèntrica
un percentatge elevat del genoma dels eucariotes està constituït per segments repetitius.
b) Per canvis en la localització de fragments:
– Inversions. Suposen la presència, en posició invertida, d’un fragment del cromosoma. Les inversions que inclouen el centròmer s’anomenen pericèntriques i les que no l’inclouen, paracèntriques. Les inversions sovint ocasionen l’herència conjunta de blocs de gens. A vegades, les inversions successives s’imbriquen i això fa possible l’establiment de seqüències filogenètiques a partir del seu estudi microscòpic.
– Translocacions. Són el canvi de localització (en un altre cromosoma) d’un fragment. Si no són recíproques s’anomenen transposicions. Els seus efectes són semblants als de les inversions.
Canvis en el nombre de cromosomes (mutacions genòmiques)
– Fusió cèntrica. Consisteix en la reducció del nombre de cromosomes per fusió de dos cromosomes homòlegs.
– Fissió cèntrica. Representa l’aparició d’un nou cromosoma per partició en dos d’un cromosoma preexistent.
– Aneuploïdia. Deriva generalment d’una segregació anormal en la meiosi i és la manca o excés d’un dels cromosomes propis de l’espècie. Per a un parell de cromosomes homòlegs determinat, els nul·lisòmics (no representats) no en tenen cap, els monosòmics només en tenen un i els trisòmics i els tetrasòmics en tenen tres i quatre, respectivament, en lloc dels dos habituals.
– Euploïdia. És l’alteració del nombre habitual de dotacions cromosòmiques senceres. Per defecte, monoploïdia, o per excés, poliploïdia (triploïdia, tetraploïdia, etc.). La poliploïdia s’origina per meiosis anormals, que donen lloc a gàmetes sense reducció cromosòmica, o bé per duplicació espontània dels cromosomes en les cèl·lules somàtiques. La poliploïdia és molt rara en els animals, però té una gran importància en el món vegetal (es calcula que prop del 50% de les angiospermes són poliploides).
Translocació recíproca
Translocació no recíproca (transposició)
Canvis en l’estructura dels cromosomes.
Canvis en el nombre dels cromosomes. Aneuploïdia, al centre, i euploïdia, a la dreta. La primera columna de l’esquerra representa el cariotip normal, mentre que les parts assenyalades en blau són les que han experimentat mutació.
10.20. Explica el significat i la importància de dues característiques fonamentals de les mutacions: a)el seu caràcter accidental i aleatori; b)el seu caràcter no direccional.
10.21. Fixa’t en cada un dels conceptes de les parelles que hi ha a continuació i explica’ls:
a) transició / transversió; b) inversió pericèntrica / inversió paracèntrica; c) translocació / transposició; d) fusió cèntrica / fissió cèntrica; e) aneuploïdia / euploïdia; f) monoploïdia / poliploïdia.
10.22. Defineix breument cada un dels termes o conceptes següents: deleteri, letal, agent mutagen, agent carcinogen o cancerigen, pauta de lectura de l’ADN, cromosoma gegant i citogenètica.
El conjunt dels gens o material genètic d’una cèl·lula o d’un organisme –que rep el nom de genoma– és molt heterogeni. Hi ha segments repetits, introns i abundants segments que no s’expressen. Fins i tot la major part dels segments que codifiquen per a ARN o proteïnes –i que per aquesta raó reben el nom de gens estructurals– només s’expressen en determinades ocasions. Els gens reguladors en controlen l’expressió.
La regulació o control de l’expressió dels gens és clau per ajustar l’activitat cel·lular. És un principi bàsic d’economia del metabolisme. El genoma d’un bacteri té informació per a unes 4000 proteïnes diferents; el d’una cèl·lula humana, per a unes quantes desenes de milers. En els organismes pluricel·lulars, si bé cada cèl·lula (nerviosa, epitelial…) disposa de tot el genoma de l’espècie, només n’interpreta una
El nucli d’una cèl·lula diferenciada de l’organisme adult conserva intactes tots els gens, malgrat que només alguns s’expressen. L’experiment aquí il·lustrat ho demostra. Si retirem el nucli d’un zigot de granota i el substituïm pel nucli d’una cèl·lula adulta (de la pell, per exemple) d’una altra granota, el zigot es desenvolupa amb normalitat en un capgròs que acaba sent una nova granota.
En això es basen les tècniques de clonació de les diferents espècies de mamífers experimentades en els darrers anys.
L’operó triptòfan d’Escherichia coli. Els gens 1, 2, 3, 4 i 5 codifiquen per a diferents enzims de la via de síntesi de l’aminoàcid triptòfan (a dalt).
En absència de triptòfan (a baix, a l’esquerra) la proteïna repressora està inactivada, de manera que l’ARNpolimerasa pot unir-se a la regió promotora i iniciar la transcripció. En presència de triptòfan, en canvi (a baix, a la dreta), la proteïna repressora pot unir-se a l’operador, la qual cosa bloqueja la transcripció dels gens dels enzims perquè bloqueja la unió de l’ARN-polimerasa al promotor.
part, i això encara només en el moment oportú; el resultat és un concert harmoniós. De fet, la diferenciació cel·lular té lloc perquè les cèl·lules produeixen i acumulen proteïnes diferents; és a dir, expressen gens diferents a ritmes diferents.
L’estudi de la regulació dels gens és un dels camps més actius de recerca. La importància de la regulació gènica es pot estimar comparant la diferent composició proteica dels teixits. Tanmateix, algunes proteïnes són comunes a totes les cèl·lules (per exemple: les ribosomals, les de les membranes del reticle, les del citoesquelet, els enzims de la glucòlisi, etc.) i es diuen constitutives. Els gens constitutius són els que les codifiquen.
El control de l’expressió gènica –conegut només de manera parcial–s’efectua a diferents nivells del procés que va de l’ADN a la proteïna mitjançant els passos següents:
–control de l’inici de la transcripció; –control de la maduració del transcrit primari; –selecció dels ARNm que seran traduïts; –activació o inactivació selectiva de les proteïnes un cop sintetitzades.
De tots aquests passos, el més important és el primer. L’inici de la transcripció està regulat per proteïnes que s’uneixen a seqüències
Promotor 5 4 321
Operador
Enzims de la biosíntesi del triptòfan
Promotor
Operador
Nivells baixos de triptòfan
Repressor inactiu
ARN-polimerasa
Part del genoma d’E. coli
Molècula d’ARNm
Inici de la transcripció 5
Nivells alts de triptòfan
Triptòfan
Repressor actiu
ARNm
reguladores de l’ADN. Aquesta unió actua de manera comparable a un interruptor, que posa en marxa o atura el procés. Algunes de les proteïnes reguladores són repressores i inactiven gens (la presència de la proteïna repressora sobre la seqüència reguladora bloqueja la traducció), mentre que altres tenen l’efecte contrari i són activadores dels gens.
El cas més senzill d’unitats organitzatives de l’ADN és el dels operons, propis dels bacteris. Diversos gens relacionats i més o menys contigus són regulats per una única seqüència reguladora o operador. Fixem-nos, per exemple, en l’operó triptòfan que regula l’expressió de 5 gens que codifiquen per a enzims de la ruta metabòlica de síntesi d’aquell aminoàcid. Es tracta d’un operó de regulació negativa per a una proteïna repressora.
La proteïna reguladora pot unir-se a la regió operadora, i quan ho fa bloqueja l’accés de la RNA-polimerasa a l’indret promotor de la transcripció, de tal manera que fa que aquesta sigui impossible. És la presència de triptòfan en el medi allò que permet que la proteïna reguladora s’uneixi a la regió operadora. Com que aquesta proteïna és al·lostèrica, si no hi ha triptòfan aquella unió és impossible i, per tant, la transcripció es posa en marxa de manera que la cèl·lula fabrica els 5enzims necessaris per a la síntesi de l’aminoàcid. En canvi, quan comença a haver-hi triptòfan, la cèl·lula atura el procés per no malbaratar recursos.
També es coneixen operons de regulació positiva modulats per proteïnes activadores. Moltes d’aquestes proteïnes han d’unir-se a una segona molècula –per exemple, l’AMP cíclic– per tal de poder enganxarse sobre la seqüència reguladora de l’ADN.
En les cèl·lules eucariotes no hi ha operons i els gens es regulen de manera individual. En aquest tipus de cèl·lules, l’activitat de les diferents ARN-polimerases és modulada per un gran nombre de proteïnes, dites factors de transcripció. La presència del factor de transcripció és indispensable per a l’inici de la síntesi, encara que sovint actuï a gran distància, és a dir, molt lluny del punt cromosòmic on hi ha la seqüència del gen estructural.
Una bona part de l’ADN dels eucariotes no s’expressa o s’expressa mínimament. D’altra banda, les cèl·lules dels diferents teixits usen proteïnes diferents. Per que? Com? En els darrers anys ha sorgit la idea que en l’epigenètica hi podem trobar un bon grapat de respostes.
Gens funcionals de còpia única
Seqüències repetides
ADN espaiador
ADN mitocondrial
cloroplàstic
Les bases moleculars de l’epigenètica
Els mecanismes epigenètics més coneguts són les modificacions químiques del mateix ADN o la modificació de les proteïnes de la cromatina, en especial les histones. En concret, els tres principals tipus d’informació epigenètica són els següents:
– metilació de l’ADN;
– imprinting genètic;
– modificació d’histones (acetilació, metilació, fosforilació…).
La metilació –postsíntesi– de l’ADN és l’alteració epigenètica més important. Molt sovint té un efecte inactivador de l’expressió gènica. Consisteix –gairebé sempre– en l’addició d’un grup metil en la posició 5’ de l’anell d’una citosina (que sol formar part d’un dinucleòtid CpG). La metilació de l’ADN és un fenomen enzimàtic que sembla tenir un paper clau en la diferenciació de les cèl·lules dels diferents teixits. La metilació de l’ADN sovint es produeix en sinergia amb la metilació de les histones.
La impronta, o imprinting, es manifesta només en organismes superiors. Els gens improntats s’expressen de manera diferent segons quin sigui el seu origen parental: un mateix gen es manifestarà –si té una marca o imprinting– de manera diferent segons si el seu origen és matern o patern (o ho farà o deixarà de fer-ho i viceversa segons quin sigui aquell origen).
Seqüències funcionals
Seqüències sense funció coneguda
Gens que codifiquen productes
Seqüències funcionals que no codifiquen productes
Heterocromatina centromèrica
Repeticions en tàndem en nombre variable (VNTRs)
Derivades de transposicions
Gens dispersos
Gens en tàndem
Minisatèl·lits
Microsatèl·lits
Transposons
Retrotransposons
Tipus d’ADN en els eucariotes.
L’epigenètica estudia els canvis heretables que s’esdevenen en la funció gènica sense que hagi tingut lloc cap canvi en la seqüència de l’ADN. Les transformacions epigenètiques tenen un important paper en el desenvolupament dels organismes i en l’evolució de les espècies. El primer en usar el terme epigenètica en el seu sentit modern fou, l’any 1942, el biòleg escocès Conrad E. Waddington, tot i que aquesta branca de la biologia s’ha desenvolupat molt recentment, arran dels darrers avenços en el coneixement de l’estructura de la cromatina. És ben cert que són els gens que contenen la informació genètica però, per a la seva correcta expressió, els cal un «ambient» epigenètic específic. Una part important d’aquest «ambient» és l’estructura de la cromatina, que pot ser influïda per l’ambient extern. D’altra banda, tot i que totes les cèl·lules d’un organisme tenen un mateix genoma, al llarg de la seva vida, i segons quin sigui el seu tipus (musculars, epitelials, nervioses, etc.), expressaran gens diferents. Molts d’aquests gens estan governats per factors epigenètics que indueixen canvis diferencials de la seva expressió. Es pot dir, doncs, que l’epigenètica estudia els canvis que fan que uns gens s’expressin o no, depenent de les condicions en què es troben. S’anomena herència epigenètica la transmissió d’informació no-ADN de cèl·lula a cèl·lula, a través de la meiosi o la mitosi.
La informació epigenètica s’ha comparat, en ocasions, amb la clau musical amb què s’interpreta una melodia: per a un mateix conjunt de notes el resultat serà diferent en funció de la clau usada. El conjunt d’aquests elements informatius rep el nom d’epigenoma. També s’ha comparat aquest epigenoma amb la puntuació i el format d’un text. Mentre que, en aquest cas, les paraules serien la seqüència de bases de l’ADN, l’epigenoma en determinaria quines porten majúscu-
la i quines s’escriuen en negreta o, també, on van els parèntesis, les comes o els punts i a part.
Actualment es coneixen diversos manifestacions de la regulació epigenètica (com els fenòmens de l’imprinting o la inactivació del cromosoma X), així com malalties relacionades amb defectes epigenètics, entre les quals diversos tipus de càncer (leucèmies, de mama...) i les síndromes d’Angelman, de Prader-Willi, i de Rett. Les diferències existents entre els bessons genèticament idèntics en són una altra manifestació, particularment interessant. Malgrat compartir la totalitat (100%) dels seus gens, aquests bessons no sempre desenvolupen les mateixes malalties amb predisposició hereditària (tal com mostren, per exemple, les recerques dutes a terme sobre l’herència de la diabetis tipus 1).
6.1.La cromatina, les histones i la modulació de l’expressió gènica
El control de l’estructura de la cromatina és clau en l’expressió del material genètic. En principi la cromatina és repressora de la transcripció dels gens perquè l’empaquetament fa que siguin inaccessibles les regions promotores (aquelles involucrades en l’inici de la transcripció) i dificulta la processó de les ARN-polimerases.
Durant la fase de maduració de la cromatina, aquesta pot canviar de conformació, ja sigui al nivell dels nucleosomes individuals o en extensions força més considerables. Aquest procés pot consistir en modificacions posttraduccionals de les histones o en un procés encara més general de remodelació de la cromatina, que implica consum d’energia en forma d’ATP i n’indueix canvis en l’estructura. En les histones hi ha «escrit», per mitjà d’un seguit de modificacions químiques, el conjunt d’instruccions amb què la cromatina regula l’expressió de la informació hereditària de l’ADN. Se suposa que aquests canvis –que assenyalen regions genòmiques específiques– podrien ser llegits per altres proteïnes capaces d’identificar els perfils de les modificacions específiques.
Aquell conjunt de modificacions químiques, que rep el nom de codi de les histones, és força variat: inclou acetilacions, fosforilacions, metilacions, etc., dels aminoàcids, en especial els situats als extrems amino-terminals de les histones H3 i H4. Sovint l’acetilació d’aquestes lisines terminals, pel fet que suposa una disminució de la càrrega positiva total de la molècula d’histona, sol implicar –en conseqüència– una menor afinitat de la histona per a l’ADN i, per tant, n’afavoreix la transcripció. Per contra, la metilació d’aquelles mateixes lisines sol anar generalment associada a la repressió de la transcripció.
Altres vegades els nucleosomes presenten histones variants. Com la CENP-A, una variant de la H3 associada a regions silencioses dels centròmers, o la «macro H2A» en relació amb el cromosoma X inactiu de les femelles dels mamífers.
La diversitat dels anticossos és el resultat de la transposició i la recombinació genètiques
La gran diversitat dels anticossos és el resultat d’una extraordinària diferenciació genètica que té lloc en el transcurs del procés de maduració dels limfòcits B, un cop aquests han estat sensibilitzats per la presència d’antígens específics.
Durant molts anys ha estat un enigma el fet que es poguessin generar prou anticossos diferents per tal de respondre epecíficament a milions d’antígens diversos. ¿És que cada limfòcit hauria de tenir un gen per a cada tipus d’anticòs?
Això és impossible perquè literalment no hi ha ADN suficient en el nucli de les cèl·lules humanes.
La molècula d’immunoglobulina, que s’assembla a una Y, té dues cadenes polipeptídiques llargues o pesants (amb 446 residus aminoàcids) i dues cadenes curtes o lleugeres (216 aminoàcids), i mentre una part de les cadenes lleugeres i de les pesants és constant (C), els extrems dels braços de la Y, tant pel que fa a les cadenes lleugeres com a les pesants, tenen una seqüència variable (V), diferent per a cada anticòs específic.
Els anticossos o immunoglobulines són proteïnes sintetitzades pels limfòcits B que tenen la funció exclusiva d’unir-se de manera específica a un determinat antigen. Tal com va descobrir el nordamericà d’origen japonès Susumu Tonegawa, que va guanyar el premi Nobel de medicina l’any 1987, l’enorme diversitat d’anticossos existents s’explica per la transcripció diferencial.
Això feia pensar que l’ADN que codifica les cadenes lleugeres es podia originar per unió de dos gens, l’un que codifica la regió variable i l’altre que codifica la regió constant. Això fou demostrat entre el 1976 i el 1978 per Susumu Tonegawa en comprovar com els gens que causaven la fracció constant i la variable d’una determinada cadena lleugera estaven molt apropats en l’ADN dels limfòcits que produïen aquest anticòs específic, però molt allunyats en l’ADN de les seves cèl·lules mare. La conclusió a què es va arribar és que els limfòcits poden seleccionar segments d’ADN que codifiquen la regió variable d’una cadena a partir de parts diferents i molt separades del genoma cel·lular, i transferir-les fins a una posició propera al gen que codifica la regió constant (que no és exactament únic) d’una cadena lleugera determinada. Actualment, se sap que l’ADN que codifica les regions variables, tant el de les cadenes lleugeres com el de les pesants, consta d’unes quantes classes de gens, escampats per tot el genoma, que poden ser traslladats i engalzats de formes diverses. Possiblement se sintetitza a partir de més de 400 gens variables (V) diferents, d’uns 12 gens de diversificació (D) i de 4 gens d’unió (J), que poden ordenar-se en combinacions diferents i que són susceptibles d’ulteriors addicions o modificacions de les seves bases. La combinació d’aquesta multitud de cadenes pesants (més variable) i de cadenes lleugeres pot arribar a donar més de 1011 molècules diferents d’immunoglobulines.
10.23. Llegeix el text següent, que va ser publicat en el diari El País l’any 1996, i contesta a les preguntes que hi ha a continuació:
D
El llevat, usat des de fa segles per fer cervesa, pa o formatge, és el primer organisme viu complex els gens del qual han estat desxifrats en la seva totalitat […]. Són 6000 gens i ahir van ser presentats simultàniament a Europa i als Estats Units. Els científics han descobert que més de la meitat dels gens del llevat són molt similars als de les cèl·lules humanes, la qual cosa té enormes implicacions per a l’estudi comparat del genoma humà i per a la recerca en el camp de les malalties hereditàries.
[…] «El genoma del llevat és 250 vegades més petit que el de l’ésser humà, però és un bon model de la cèl·lula humana», va dir ahir, a Brussel·les, Bruno Hansen […]. A diferència dels bacteris, que no tenen nucli, els llevats –igual que els animals i les plantes–tenen el seu material genètic preservat a l’interior del nucli cel·lular. Els 6000 gens del llevat –l’ésser humà en té uns 100000– estan agrupats en 16 cromosomes i escrits amb 12 milions d’unitats químiques (les bases).
[…] «Més de la meitat dels gens del llevat són similars als dels humans», va explicar ahir André Goffeau, coordinador del projecte. […] Els científics no saben encara per a què serveixen uns 2000 gens dels 6000 que té el llevat […]. El que sí saben és que prop del 30% d’aquest genoma és redundant […].
a) Un any abans, el grup de recerca del nordamericà Craig Venter havia donat a conèixer el primer genoma complet d’un bacteri (el de l’Escherichia coli). Per què, doncs, és tan important el coneixement del genoma d’un llevat, si no és el primer genoma complet conegut?
b) Quants nucleòtids té un gen del llevat, de mitjana?
c) La informació del genoma del llevat està formada per, aproximadament, 3 × 10⁹ parells de nucleòtids. Suposant que utilitzessis només una lletra (A, G, C o T) per a cada nucleòtid i no deixessis cap línia en blanc, quantes pàgines d’aquest llibre necessitaries per transcriure tota aquesta informació? I en el cas del genoma de l’home?
d) Què vol dir que prop del 30% del genoma del llevat és redundant? En el panorama biològic, ¿és estrany que una part important del genoma d’una espècie contingui informació que no es tradueix a proteïnes? Se sap quines funcions té aquesta informació?
10.24. Donat un bri d’ADN d’un procariota 3’GAGGGGAAATTCT5’…, resol les qüestions següents, sempre en relació amb aquest filament:
a)Escriu la seqüència del bri complementari.
b)Escriu la seqüència de l’ARNm format per transcripció d’aquell ADN.
c)Escriu la seqüència del pèptid resultant.
d)Escriu la seqüència del pèptid en el cas que el transcrit a ARNm fos el bri complementari de l’ADN.
e)Digues si les respostes c) i d) serien les mateixes si el bri d’ADN fos part del material genètic d’un eucariota.
10.25. En condicions adequades, el cromosoma d’un bacteri com ara l’Escherichia coli es replica cada 40minuts. Si sabem que el seu ADN té una longitud d’1,4 mm i que la replicació és bidireccional, a quina velocitat, expressada en voltes/minut, s’ha de desenrotllar l’hèlix de l’ADN a mesura que avança la forqueta de replicació?
10.26. Defineix els termes o conceptes següents: balanceig, exó, codi genètic i element genètic mòbil
10.27. Fent una analogia entre els models teòricament possibles (conservatiu, semiconservatiu i dispersiu) per a la duplicació de l’ADN i la transcripció, respon a les preguntes següents:
a)¿La transcripció seria conservadora, semiconservadora o dispersiva? Raona la resposta.
b)Quina fracció de l’ADN es copia durant el procés de la replicació?
c)Quina fracció d’aquest mateix ADN es copia durant la transcripció?
10.28. Donat un bri d’ADN d’un procariota 3’TATCGGAGAGACACATTTCC5’…, resol les qüestions següents, sempre en relació amb aquest filament:
a) Escriu el bri complementari.
b)Escriu l’ARNm format per transcripció d’aquell ADN.
c)Escriu la seqüència del pèptid resultant.
d)Escriu la seqüència del pèptid en cas que el filament transcrit a ARNm fos el bri complementari d’ADN.
10.29. Repeteix els passos de l’activitat anterior amb els brins següents:
a) …3’TACATACAGCCC5’…
b) …5’CCGCAAACGCTTAAT3’…
c) …3’CGCCATATC5’…
10.30. Per obtenir ARN sintètic es pot partir de mescles de ribonucleòtids i afegir-hi un enzim capaç d’enllaçar-los a l’atzar.
Suposa que ho volguessis fer amb una mescla d’un 70% de ribonucleòtids d’uracil i un 30% de ribonucleòtids de citosina i respon a les preguntes següents:
a)Quins triplets o codons són possibles?
b)Amb quines freqüències relatives es reproduirien?
c)Quina composició peptídica, qualitativa i quantitativa, tindria la proteïna resultant?
10.31. Si in vitro has obtingut els ARN sintètics següents:
a)UUUUUUUUUUUU;
b)UAUAUAUAUAUA;
c)UACUACUACUAC; quins pèptids esperes obtenir de la síntesi in vitro a partir d’aquestes seqüències?
10.32. El polinucleòtid sintètic …5’AAAAAAAA AAAAC3’ s’utilitza com a ARNm per a la síntesi in vitro d’un pèptid. Quan aquesta molècula resultant és tractada molt breument amb l’enzim carboxipeptidasa, s’obté l’aminoàcid asparagina. Tenint en compte aquest fet, en quin sentit podem concloure que opera la síntesi proteica: en sentit 3’ → 5’ o bé en sentit 5’ → 3’? Per què?
10.33. Tenint en compte que un gen codifica una cadena polipeptídica formada per una seqüència alternada dels aminoàcids fenilalanina (Phe) i tirosina
(Tyr), i que el codó de la Phe és UUU i el de la Tyr és UAU, contesta a les preguntes següents:
a) Quina és la seqüència de nucleòtids corresponent de la cadena d’ADN que es transcriu?
b) Quina és la seqüència de nucleòtids de la cadena d’ADN que no es transcriu?
c) Quina és la seqüència de nucleòtids dels anticodons dels ARNt d’aquests dos aminoàcids?
10.34. Fixa’t en les expressions que tens a continuació. Defineix-les i explica quina diferència hi ha entre cada parella:
a) transposons / plasmidis;
b) transposasa / transcriptasa inversa;
c) transposició / recombinació;
d) seqüència d’inserció / transposó;
e) gen saltador / pseudogèn.
10.35. Per què uns esdeveniments aleatoris, no direccionals i sovint deleteris, com ara les mutacions, poden ser la base de l’evolució? Com s’explica aquest fet?
10.36. Dibuixa de manera esquemàtica (i amb l’ajut de lletres per simbolitzar els gens) els parells de cromosomes que difereixen per les mutacions següents: a) inversió; b) deleció; c) inversió pericèntrica; d) deleció intercalar; e) fusió cèntrica; f)fissió cèntrica.
10.37. Un ARNt té l’anticodó 5’-GGG-3’. A causa d’una mutació en el gen que codifica aquest ARN de transferència, l’ARN resultant té l’anticodó 5’-GGA-3’. Contesta a les preguntes següents:
a) Quin codó reconeix l’ARNt normal? Indica’n l’extrem 5’ i el 3’.
b) Quin codó reconeix l’ARNt mutant? Indica’n l’extrem 5’ i el 3’.
c) Quin aminoàcid porta l’ARNt normal i quin, el mutant?
10.38. Els bacteris del tipus Escherichia coli són microorganismes capaços de sintetitzar triptòfan quan són cultivats en un medi sense aquest aminoàcid. En canvi, quan s’afegeix triptòfan al medi de cultiu, els bacteris deixen de sintetitzar-ne.
a) Explica aquest mecanisme de regulació en termes de control gènic.
b) Com anomenaries aquest tipus de regulació?
10.39. Copia els mots o sintagmes del primer grup i aparella’ls amb els del segon grup.
Primer grup: Oswald Avery, aberració cromosòmica, eliminació d’introns, mutació gènica, operó, replicació, traducció, transcriptasa inversa, transcripció, triplet de bases.
Segon grup: ARN-polimerasa, ARNt, codó, desplaçament de la pauta de lectura, l’ADNés el principi transformador de Griffith, maduració de l’ARN, regulació de l’activitat gènica, retrovirus, semiconservadora, trisomia.
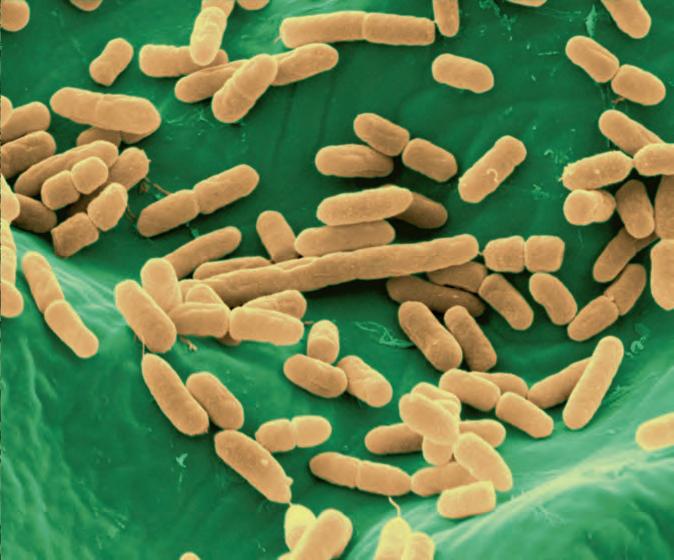
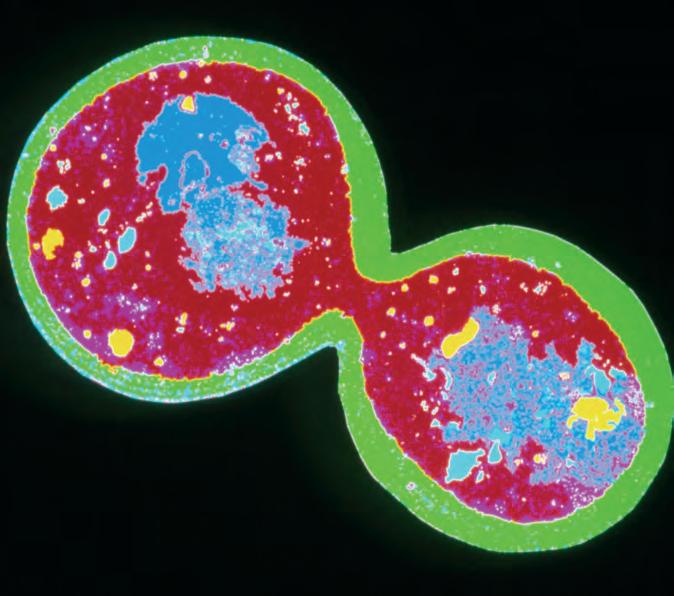
Escherichia coli vistes al microscopi electrònic de rastreig.
Microfotografia (en fals color) de Saccharomyces cerevisae en gemmació vist al microscopi electrònic de transmissió (7500x).
1. L’anàlisi del material genètic d’un determinat organisme ens dóna la composició de bases següent: –adenina, 21%; –uracil, 29%; –citosina, 23%; –guanina, 27%.
Respon a les preguntes següents:
a)De quina molècula es tracta?
b)És de doble filament o de filament senzill?
c)A quin organisme pertany?
2. El dibuix mut d’aquesta pàgina representa el flux d’informació en una cèl·lula eucariota. Fes-ne una còpia i indica-hi les parts i els processos següents (alguns els hauràs de posar més d’una vegada): ADN, aminoàcids, ARN missatger, ARNt, cadena polipeptídica, citoplasma, embolcall nuclear, energia (en forma de nucleòtids trifosfat), filament codificador, filament no codificador, gen, nucli, porus de l’embolcall, producte de l’expressió del gen, ribosoma, subunitat ribosòmica gran, subunitat ribosòmica petita, traducció i transcripció.
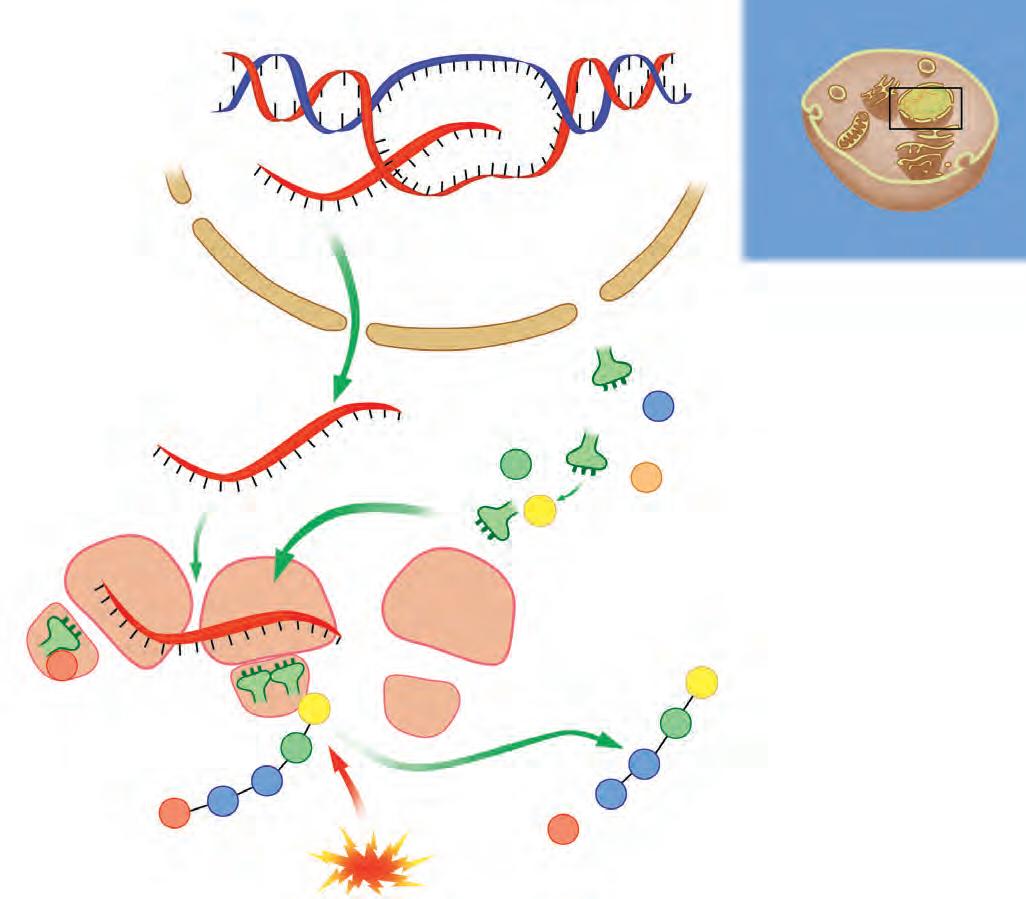
3. Contesta a les preguntes següents:
a)Quin és el percentatge de guanina d’un ADN vegetal amb un contingut d’adenina del 20%? Per què?
b)Si un codó de l’ARN missatger que codifica l’aminoàcid asparagina és 5’AAU3’, quina és la seqüència de bases de l’anticodó de l’ARNt corresponent? (Especifica quin és l’extrem 5’ i quin el 3’.)
c)Quina és la funció dels codons que no codifiquen cap aminoàcid?
d)En un experiment de laboratori observem que un determinat ARNm humà, 5’AUA3’, no codifica per a l’aminoàcid isoleucina, sinó que ho fa per a l’aminoàcid metionina. De quin tipus d’ADN deriva aquell ARNm? Per què?
4. Llegeix amb atenció el següent text de Christian de Duve i contesta a les preguntes que hi ha a continuació:
Algunes substàncies actuen des del punt de vista molecular impedint o distorsionant el flux d’informació genètica en alguna de les seves fases: replicació, transcripció o traducció. Algunes d’aquestes substàncies són, per exemple, l’actinomicina, que s’uneix a l’ADN i n’atura la duplicació, o l’ α-amanitina, del bolet verinós Amanita phalloides, que bloqueja l’acció de l’ARNpolimerasa II.
L’antibiòtic rifampicina bloqueja la transcripció perquè s’uneix a l’ARN-polimerasa, mentre que alguns altres dificulten o impedeixen la traducció. Entre ells, la puromicina, que provoca, en eucariotes i procariotes, la terminació de la síntesi peptídica abans d’hora, o la cicloheximida, que inhibeix la peptidiltransferasa en els eucariotes. Amb una acció específica sobre la traducció en procariotes hi ha, per exemple, les tetraciclines, que impedeixen que comenci la traducció, o les estreptomicines, amb efectes semblants i que causen també errors en la traducció quan aquesta comença; el cloramfenicol, que inhibeix la peptidiltransferasa, o l’eritromicina, que bloqueja el ribosoma i impedeix que continuï la lectura sobre l’ARNm. Molts d’aquests antibiòtics que dificulten la síntesi de proteïnes en els procariotes tenen utilitat mèdica per lluitar contra els bacteris patògens. No obstant això, alguns resulten secundàriament tòxics per a l’home, com és el cas del cloramfenicol (que distorsiona la biosíntesi en els mitocondris i pot produir anèmia) i han de ser refusats.
Si és possible lluitar amb èxit contra els bacteris amb armes moleculars que espatllin o anul·lin la seva maquinària, és perquè aquesta és ben diferent de la de les cèl·lules de l’hoste, que no en resulten afectades. El fet que els virus no tinguin maquinària pròpia i usin la de les cèl·lules que els hostatgen explica per què, en canvi, és tan difícil trobar medicaments que siguin eficaços contra ells i que al mateix temps no tinguin greus efectes secundaris indesitjats.
CHRISTIANDE DUVE, La cèl·lula viva
a) Copia i completa la taula de sota amb els noms de les substàncies que actuen sobre la replicació, la transcripció i la traducció de la informació genètica en els procariotes, i amb els noms de les substàncies que ho fan en els eucariotes.
ProcariotesEucariotes
Replicació
Transcripció
Traducció de la informació genètica
b) Què és un antibiòtic? Quina utilitat té?
c) Explica algunes de les característiques que hauria de tenir un antibiòtic ideal.
d) L’α-amanitina, del bolet verinós Amanita phalloides, bloqueja l’acció de l’ARN-polimerasaII. ¿Sobre quins organismes té efectes, doncs: sobre els procariotes, els eucariotes o tots dos? Per què?
e) Per què en medicina s’utilitza la tetraciclina i no s’utilitza la cicloheximida si, aparentment, fan el mateix?
f) Per què el cloramfenicol, que té propietats antibiòtiques comprovades, no es troba habitualment a les farmàcies? Per què el cloramfenicol pot produir anèmia? (No n’hi ha prou de contestar «que distorsiona la biosíntesi en els mitocondris», sinó que cal que ho expliquis una mica més.) Per què cal moderar l’ús de les tetraciclines i d’altres substàncies semblants?
g) Com explicaries el fet que alguns laboratoris farmacèutics van continuar venent al Tercer Món
antibiòtics a base de cloramfenicol, una vegada que la legislació dels països occidentals en prohibís la venda en el propi territori?
h) Per què és tan difícil trobar medicaments eficaços contra els virus?
5. Observa la il·lustració del costat, en la qual hi ha una doble hèlix d’ADN en què una cadena ha perdut un segment, i contesta a les preguntes següents:
a)Quins tipus d’enllaços s’han trencat?
b)Quins seran els nucleòtids que s’afegiran? En quin ordre i a partir de quin extrem ho faran?
c)Com són les dues cadenes, una respecte de l’altra?
d)¿Pot tenir algun avantatge l’aparició d’errors que no perjudiquin la supervivència de l’individu?
e)Com s’anomenen en general aquests errors?
6. El bacteri Escherichia coli sintetitza els enzims necessaris per metabolitzar la lactosa si és cultivat en un medi que en conté. En canvi, la síntesi enzimàtica s’acaba si s’addiciona glucosa al medi de cultiu.
a)Quin sentit té aquesta mena de comportament?
b)Explica aquest mecanisme en termes de control gènic.
c)Quin nom rep el model que ho explica?
1.Salut, malaltia i genètica
2.El genoma humà
3.Els marcadors biològics
4.Gens, cromosomes i mutacions
5.Genètica i càncer
L’ADN de cada individu és únic i constitueix un marcador biològic de gran precisió.
En els darrers anys, poques àrees del coneixement han experimentat un progrés tan gran com la genètica humana. Avui dia, comencem a conèixer els mecanismes moleculars de moltes de les nostres característiques genètiques. També hem après a identificar un gran nombre de mutacions gèniques i d’alteracions cromosòmiques causants de malalties hereditàries. Moltes d’aquestes malalties es podran tractar i guarir en un futur que, en alguns casos, no és gaire llunyà.
La teràpia gènica és la gran esperança del futur per al tractament d’algunes malalties genètiques. Consisteix a introduir en les cèl·lules d’un individu malalt un gen sa, per tal que pugui substituir el gen defectuós.
JAVIER BENÍTEZ ORTIZ,
Per què ens assemblem als nostres pares (1997)
Totes les característiques biològiques de l’ésser humà –des del grup sanguini, el color dels cabells o el timbre de veu– estan contingudes en els seus cromosomes. Ara bé, n’hi ha prou amb un petit error en el patrimoni genètic de l’individu perquè la salut se’n ressenti greument. A vegades, un repartiment defectuós dels cromosomes durant la meiosi dóna lloc al naixement d’un infant severament afectat (síndrome de Down). Altres vegades l’errada encara és més subtil, talment una falta d’ortografia en la informació continguda en algun gen. D’aquesta manera, a causa d’informacions defectuoses en algun dels gens, hi ha nadons que neixen amb músculs que no funcionen (distròfia), d’altres es queden cecs (retinitis), n’hi ha que no poden respirar (mucoviscidosi) i alguns estan exposats a greus hemorràgies (hemofília). Les malalties hereditàries són malalties degudes a alguna alteració dels gens o dels cromosomes. Sovint, es manifesten des del moment del naixement. No s’han de confondre, però, amb les malalties produïdes per un desenvolupament defectuós de l’embrió o del nadó, com és ara el cas de la paràlisi cerebral, causada per lesions irreversibles de les neurones motores en el moment del naixement. També hi ha malalties hereditàries que no es manifesten fins al cap dels anys. És el cas d’un tipus de demència –la corea de Huntington– que apareix després dels 40 anys. Altres vegades, la presència de gens anòmals atorga una predisposició a desenvolupar una malaltia (com, per exemple, en el càncer de còlon), la qual no necessàriament s’acabarà manifestant.
Fins fa molt poc, les malalties genètiques –de les quals no es coneixia la causa– eren molt difícils de tractar i, sens dubte, impossibles de curar. De mica en mica, el panorama està canviant. En alguns casos, l’estudi dels mecanismes moleculars de les malalties ha permès de trobar-hi un remei. S’espera que, en el futur, la teràpia gènica permetrà guarir-ne moltes.
Plec simiesc característic de la mà d’un afectat per la síndrome de Down.
El genoma humà està constituït, aproximadament, per algunes desenes de milers de gens (30 o 40 mil, o potser més), repartits en els diferents cromosomes. L’any 1956, Joe H. Tijo i Albert Levan van descobrir que el nombre de cromosomes humans és de 46 (23 parells). Les tècniques actuals permeten identificar i estudiar la dotació cromosòmica d’un organisme atenent el nombre, la mida i la forma dels cromosomes de les seves cèl·lules. Això s’anomena cariotip.
El perfeccionament de les tècniques per cultivar cèl·lules i tenyir els cromosomes ha permès desenvolupar un mètode d’anàlisi del cariotip humà, el qual s’utilitza als laboratoris de citogenètica de tots els hospitals.
El cariotip humà. Dibuix esquematitzat a partir de la morfologia i la distribució de bandes dels diferents cromosomes quan es tenyeixen amb els colorants nuclears.
5 ml de sang venosa
Ordenació dels cromosomes
Separació dels eritròcits i recuperació dels leucòcits
Addició de colquicina al cultiu
Cultiu dels leucòcits (3 dies a 37 °C)
Separació dels leucòcits per centrifugació
Preparació
Tinció i microfotografia
Consisteix en el cultiu de glòbuls blancs (o de cèl·lules embrionàries, en el cas del diagnòstic prenatal) en un medi on es divideixen activament. Al cap d’un temps, s’hi afegeix un tòxic vegetal (la colquicina) que atura la mitosi precisament en el moment en què els cromosomes són més aparents i individualitzats (metafase). Aleshores, se’n fan preparacions microscòpiques, les quals es tenyeixen amb colorants que en ressalten les bandes (per exemple el Giemsa, que tenyeix més fosques les regions riques en A i T) i es fotografien. Després, es retallen els cromosomes i, sobre la base d’unes pautes estandarditzades (en funció de la forma i del patró de bandes), s’ordenen i s’enganxen sobre un paper des del parell 1 fins al 23 (el dels heterocromosomes o cromosomes sexuals: XX en les dones, XY en els homes). Així s’obté un cariotip ordenat.
L’estudi sistemàtic del cariotip permet identificar anomalies en l’estructura (duplicacions, delecions…) o en el nombre dels cromosomes (monosomies, trisomies…), és a dir, aberracions cromosòmiques.
L’ Homo sapiens i el ximpanzé: inversions i fusions cromosòmiques
L’espècie humana té 46 cromosomes, mentre que els pòngids (el ximpanzé i el goril·la, per exemple) en tenen 48. Un estudi detallat dels patrons de bandes dels cromosomes de les dues espècies mostra que en l’ésser humà ha tingut lloc una fusió cromosòmica (el cromosoma 2 humà conté la major part del material genètic dels cromosomes 12 i 13 del ximpanzé), i sis inversions respecte al ximpanzé i vuit respecte al goril·la.
Algunes de les diferències cromosòmiques entre els primats superiors són inversions paracèntriques, però la major part són inversions pericèntriques (que comprenen el centròmer).
Tècnica d’obtenció d’un cariotip.
La tècnica de l’electroforesi o separació, mitjançant l’acció d’un camp elèctric, de partícules carregades elèctricament permet comparar els diferents patrons moleculars dels individus.
La seqüenciació de l’ADN.
L’objectiu del Projecte Genoma Humà és analitzar l’estructura de l’ADN humà per tal de determinar la posició de cadascun dels gens en la seqüència completa. El 26 de juny de l’any 2000, Francis Collins, coordinador del projecte públic internacional de recerca, i Craig Venter, aleshores cap de recerca de l’empresa privada d’enginyeria genètica Celera, anunciaren que s’havia completat en un 97% la seqüenciació dels 3000 milions de parells de nucleòtids del genoma humà. Des de la Casa Blanca donaven a conèixer els resultats obtinguts, acompanyats pel president dels Estats Units i, en videoconferència, pel primer ministre del Regne Unit.
Aquest projecte, començat l’any 1988 i destinat a seqüenciar tot el material genètic humà (mapa genètic), és la més gran empresa d’investigació en ciències biomèdiques que mai s’hagi dut a terme, i representa un esforç internacional d’investigació genètica en el qual col·laboren més de dos-cents equips científics de diferents països. Un cop fet el primer pas –la seqüenciació de les bases de l’ADN humà–, ara es tracta d’identificar tots els gens de l’ADN i determinar-ne la funció. Actualment, només es coneix la funció d’uns 3000 gens, dels aproximadament 30000 o 40000 que, segons es calcula, integren el genoma humà.
S’analitzen i es comparen totes les dades
Marcadors fluorescents
Porció d’ADN que cal seqüenciar
Porció d’ADN marcada
Gel d’electroforesi
Analitzador
Làser
Ordinador
Monitor
Per fer els mapes, s’utilitzen els denominats gens marcadors, gens amb al·lels diferents i identificables, dels quals s’estudien les taxes de recombinació al llarg de les generacions en determinats grups de població, com per exemple els mormons d’Utah, que sovint presenten famílies molt nombroses i mantenen registres genealògics molt precisos.
En síntesi, la feina consisteix a seqüenciar els gens i després aquestes seqüències (de milers de nucleòtids) són emmagatzemades en potents ordinadors (bancs de dades o genoteques) que en permeten la comparació. L’estratègia de Venter, que utilitzà el mètode shotgun (escopeta de gens), accelerà el procés. En lloc d’estudiar els cromosomes ordenadament i procedir pas a pas, els partí en milers i milers de petits fragments a l’atzar, més fàcils d’estudiar, i després els ordenà amb potents equips informàtics a partir dels solapaments detectats en les seves seqüències.
Gràcies al desenvolupament del Projecte Genoma Humà s’esperen importants avenços mèdics, no tant per a una suposada teràpia gènica, actualment poc factible, sinó més aviat per a l’obtenció de medicaments específics i per avançar en el diagnòstic precoç i en el tractament de les malalties hereditàries. És el cas, per exemple, d’una de les més freqüents: la mucoviscidosi o fibrosi cística, que afecta un de cada 2000 nounats. La recerca genètica ha permès avançar considerablement en el seu coneixement.
Els reptes de l’ús de la informació genètica
Gràcies a l’obtenció d’informació genètica serà possible, per exemple, definir poblacions de risc per a determinades malalties, establir una anàlisi genètica de conductes o hàbits socials i culturals, patentar gens modificats i teràpies, etc. Aquests fets plantegen problemes d’índole ètica i legal, ja que aquesta informació podria ser utilitzada per discriminar determinats col·lectius laboralment, socialment o econòmicament.
La protecció de la intimitat d’aquelles persones que són diagnosticades com a portadores de gens per a malalties ara per ara incurables és un tema clau. Per exemple, les persones que als Estats Units donen positiu al test del gen per a la corea de Huntington pot ser que perdin la feina, o que no en trobin, o que no puguin contractar una assegurança de vida.
A més, cal tenir en compte l’enorme repercussió econòmica que tenen, i tindran, les ingents aplicacions pràctiques que es deriven d’aquells transcendentals descobriments. Com que s’espera que dels coneixements genètics es puguin obtenir nous medicaments, les empreses de biotecnologia patenten els seus desenvolupaments i, en contra de la lliure circulació de la informació genètica que havia estat la norma fins al 2000, cobren per accedir a les seves bases de dades.
El Projecte Genoma Humà ha permès conèixer la seqüència de bases de gairebé tot l’ADN humà. També es coneix el genoma sencer d’alguns organismes especialment estudiats (el ratolí, la mosca del vinagre o drosòfila, el cuc Rhabditiselegans de la classe dels nematodes, la planta Arabidopsis thaliana, etc.). Ara bé, conèixer la seqüència és només un primer pas, a partir del qual caldrà desenvolupar noves disciplines científiques, com ara la genòmica, que estudia la funció dels gens, i la proteòmica, que s’ocupa de les proteïnes codificades per un genoma complet.
El Projecte de l’Epigenoma Humà és una extensió del Projecte del Genoma Humà que, mitjançant la col·laboració d’entitats públiques i privades, té per objecte l’estudi dels patrons de metilació del genoma humà en els diferents teixits i identificar-ne i catalogar les denominades posicions variables de metilació (MVPs).
Se sap que la metilació flexible de l’ADN en determinades circumstàncies és un mecanisme clau per entendre com la influència externa pot afectar la funció del genoma. D’aquí ve, precisament, el gran interès de l’epigenètica humana: pot mostrar els nexes entre genètica, malaltia i medi ambient.
En l’actualitat ja s’ha completat l’estudi dels patrons de metilació del complex major d’histocompatibilitat (MHC), una regió del cromosoma 6 relacionada amb un gran nombre de malalties i en el qual s’han identificat MVPs en uns 150 loci.
Pel que fa a la terapèutica, del desenvolupament del projecte s’espera l’obtenció d’eines eficaces per al diagnòstic precoç de malalties cancerígenes iautoimmunes.
La recerca en genètica humana té, entre les seves finalitats, poder substituir els gens mutats que produeixen malalties pels corresponents gens normals o reparats. En això consisteix l’anomenada teràpia gènica. Cultiu cel·lular.
L’objectiu definitiu en el camp de les malalties genètiques –encara no assolit– és la teràpia gènica (literalment, ‘guarir els gens’). Si un gen que codifica per a una proteïna necessària no funciona, i la manca d’aquesta proteïna és la causa de la malaltia, una solució possible és la de subministrar al malalt repetides dosis de la proteïna en qüestió; però seria molt millor si es pogués reparar el gen afectat.
La primera solució és la farmacològica. Els hemofílics, per exemple, reben un tractament a base de factors de coagulació de la sang (proteïnes) que ells no tenen. Aquests factors de coagulació procedeixen de la sang d’altres persones, si bé actualment, en alguns casos, ja és possible fabricar-los per enginyeria genètica.
La segona solució, en canvi, seria la teràpia gènica. En aquest cas, es tracta de subministrar al malalt cèl·lules (preferentment les pròpies, per evitar rebuig) en les quals el gen afectat ha estat reparat (per manipulació genètica), per tal que una vegada dins l’organisme funcioni correctament.
La fibrosi cística o mucoviscidosi és una malaltia hereditària causada per un gen autosòmic recessiu. A Europa és relativament freqüent, ja que un de cada 2000 nounats presenta la malaltia (és homozigot recessiu) i un de cada 25 individus és portador del gen, encara que no manifesta la malaltia.
Les manifestacions orgàniques de la malaltia consisteixen en una alteració de les glàndules exocrines, les quals elaboren secrecions massa viscoses que obstrueixen els conductes pancreàtics i les vies respiràtories i ocasionen infeccions sovintejades i obstrucció pulmonar. Sense un tractament adequat (mucolítics, antibiòtics i fisioteràpia), les lesions pulmonars irreversibles que se’n deriven poden portar a la mort prematura del malalt durant les dues primeres dècades de la vida.
Ara per ara, el tractament de la fibrosi cística només és pal·liatiu, però hi ha una diversitat de protocols experimentals de tractament per mitjà de teràpia gènica aprovats i en curs, amb resultats moderadament satisfactoris, que miren d’utilitzar virus atenuats com a vehicles per introduir el gen normal en les cèl·lules pulmonars i fer que s’hi expressi.
La història de la recerca sobre la fibrosi cística és un bon exemple dels primers èxits de la tecnologia genètica aplicada a la medicina. L’any 1985, un equip d’investigadors del Saint Mary’s Hospital de Londres descobrí que el gen causant està situat en el braç llarg del cromosoma 7. Quatre anys més tard, l’equip de l’Hospital Infantil de Toronto, dirigit per Lap-Chee Tsui i en el qual treballaven més de 50 persones, va aïllar el gen. Aleshores, un cop conegut el gen, fou possible localitzar la proteïna que aquest codifica i esbrinar-ne la funció a l’organisme.
La proteïna resultà ser la CFTR (cystic fibrosis transmembrane regulator), que, en condicions normals, afavoreix el pas dels ions clor a través de la membrana plasmàtica. En canvi, si és present la proteïna alterada (codificada pel gen mutat) aquest flux és deficitari en aigua, motiu pel qual els petits conductes corporals s’embussen.
Prop d’un 80% de les persones amb mucoviscidosi presenten una mutació consistent en la deleció de 3 nucleòtids concrets. Tanmateix, a hores d’ara es coneixen més de 600 mutacions diferents que ocasionen una CFTR alterada.
Actualment, la detecció del gen de la fibrosi cística es pot efectuar per mitjà d’una analítica força simple, a partir d’una mostra de sang o d’un altre teixit. En el cas que un membre d’una parella sàpiga que és portador del gen, és important que l’altre membre efectuï la prova, ja que si ambdós són portadors del gen tenen una probabilitat del 25% de tenir fills afectats; en canvi, si només un dels membres n’és portador, la probabilitat és nul·la.
Bateria de dispositius de còpia d’ADN per mitjà de la reacció en cadena de la polimerasa (PCR) al Joint Genome Institute de Califòrnia, en el marc del projecte HUGO de recerca de l’ADN humà.
Els diferents al·lels d’un mateix gen determinen proteïnes lleugerament diferents. Com que el nombre de gens és molt elevat, cada persona presenta unes combinacions singulars que la identifiquen, llevat dels bessons univitel·lins. Algunes d’aquestes combinacions reben el nom de marcadors biològics i tenen moltes aplicacions pràctiques, entre les quals destaquen el reconeixement de l’individu en l’àmbit legal i, fins i tot, criminal (demandes de paternitat dubtosa; identificació a través de restes de sang, pèls, etc.), i l’estudi de les reaccions d’incompatibilitat en el cas de transfusions i trasplantaments, ja que les proteïnes alienes poden actuar com a antígens contra els quals reacciona el sistema immunològic.
S’anomenen grups sanguinis els sistemes de proteïnes presents a la sang pels quals els individus presenten polimorfisme, és a dir, variants proteiques distintes originades per diferents al·lels d’un mateix gen. Els més populars són el sistema AB0 i el factor Rh. El sistema AB0 està constituït per proteïnes de la superfície dels globuls vermells determinades per tres al·lels d’un gen autosòmic situat en el cromosoma 9 (en realitat, la situació és més complexa, però a efectes pràctics es pot considerar així): IA, IB i i, dominants els dos primers sobre i i codominants entre si. Tal com es pot veure en el quadre de peu de pàgina, les proteïnes de superfície dels glòbuls, A o B, són reconegudes com a estranyes (antígens o aglutinògens) per les persones que no les tenen, les quals produeixen anticossos (o aglutinines) anti-A (o α) i anti-B (o β), respectivament. En el moment de fer una transfusió, cal tenir-ho en compte. En la pràctica, s’empra sang del mateix grup, tot i que dels quatre grups existents (A, B, AB i 0), la sang dels individus del grup 0 no pot ser bloquejada per cap aglutinina (són «donadors universals»), mentre que els del grup AB les poden rebre totes (són «receptors universals»).
AB 0 A
Antígens en la superfície dels glòbuls vermells (aglutinògens)
Anticossos presents en el sèrum (aglutinines)
AB 0 A
Disposem tres gotes de sang sobre un portaobjectes
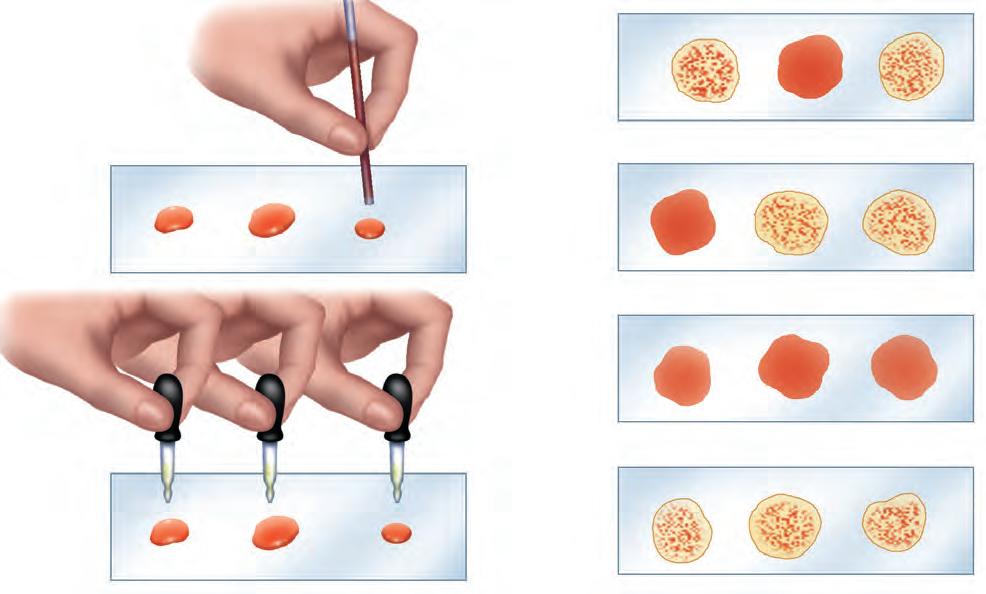
El factor Rh és encara més senzill. Hi ha dos grups: Rh positiu (Rh+) i Rh negatiu (Rh–), segons si l’individu és portador o no d’un gen dominant (D) sobre el seu al·lel recessiu (d ).
En determinats casos, el factor Rh pot ser causa d’una greu incompatibilitat maternofilial. Això passa quan una mare Rh– que s’ha sensibilitzat prèviament durant el final de l’embaràs o en el moment del part d’un fill Rh+ (moments en què la sang del fetus entra en contacte amb la de la mare), gesta un segon fill Rh+ (el pare ha de ser, és clar, Rh+). En aquests casos, cal fer un seguiment mèdic atent, ja que la reacció d’incompatibilitat podria posar en perill la vida del fill. Habitualment, després del primer part s’administren a la mare anticossos capaços de destruir els glòbuls vermells del fill, per tal d’evitar que la seva presència generi en la mare la formació d’anticossos anti Rh+ .
Aquesta situació no és gaire freqüent en l’àmbit mediterrani, on la freqüència del gen d i, per tant, d’individus Rh– és baixa, però es pot donar en altres grups de població. Tal com es pot deduir fàcilment, l’anàlisi genètica revela que determinades combinacions hereditàries són impossibles. Així, per exemple, un home i una dona Rh– mai no podran tenir un fill Rh+, de la mateixa manera que, posem per cas, una parella formada per una persona del grup B i una del grup 0 no poden tenir un fill A. Aquesta és la base per resoldre alguns casos de paternitat dubtosa. Quan l’anàlisi genètica indica possible compatibilitat, el dictamen legal de paternitat s’ha de basar en l’anàlisi d’un nombre considerable de grups sanguinis. En canvi, n’hi ha prou amb una sola combinació impossible per descartar la paternitat.
Identificació dels grups sanguinis AB0. La sang portadora de l’antigen A es coagula amb sèrum anti-A (que conté les aglutinines α), mentre que la sang portadora de l’antigen B es coagula amb sèrum anti-B (que conté les aglutinines β). El sèrum anti-AB (que conté aglutinines α i β) coagula qualsevol sang que contingui antígens A o B. Per a cadascun dels quatre grups sanguinis, disposem un portaobjectes on, per mitjà d’un tub capil·lar, posem tres gotes de sang. A cada una hi afegim –d’esquerra a dreta– tres gotes de sèrum d’identificació, respectivament, anti-A, anti-B i anti-AB. La il·lustració en mostra els resultats.
Per mitjà de la tècnica de la PCR és possible comparar determinades seqüències molt variables de l’ADN humà (extretes d’una mostra ínfima de material biològic, com ara un cabell o una gota de sang) amb les mateixes seqüències de l’ADN d’altres persones.
La singularitat d’aquestes regions de l’ADN permet utilitzar aquesta tècnica en medicina forense. En la il·lustració, M ensenya les reaccions de la PCR realitzades sobre la mostra forense, i A, B i C les seqüències de l’ADN de tres persones sospitoses. En aquest exemple, els subjectes A i C poden ser descartats, mentre que B es converteix en un clar sospitós.
l’ADN
– Sentit de la migració +
Electroforesi (separació dels fragments d’ADN)
Separació dels dos filaments Visualització de l’ADN
Rentat i autoradiografia
3.2. El sistema HLA o complex principal d’histocompatibilitat (MHC)
El sistema immunològic de tots els vertebrats reconeix, especialment, uns antígens denominats d’histocompatibilitat, que es troben a la superfície de la major part de les cèl·lules.
Per tant, si el sistema detecta la presència de cèl·lules estranyes, les destrueix. Els principals antígens són els que formen el complex principal (o «major») d’histocompatibilitat (MHC), que en l’ésser humà s’anomena també sistema HLA (sigla de Human Leukocyte Antigen), perquè s’estudien en els leucòcits.
Aquests antígens –regits per un grup de gens del cromosoma 6 amb múltiples al·lels (en alguns casos més de 100!)–, presenten una variabilitat enorme, de manera que constitueixen una mena de carnet d’identitat biològic.
Quan s’ha de practicar un trasplantament, cal fer anàlisis específiques de sang que permetin seleccionar d’entre els possibles donants el tipus HLA que presenta més similitud (el qual, lògicament, es troba a vegades entre els familiars més propers).
En medicina legal o criminal, per identificar les persones, també s’utilitzen les denominades empremtes genètiques, és a dir, l’anàlisi i comparació de la seqüència de regions hipervariables de l’ADN, com ara les seqüències de nombre variable de repeticions en tàndem o VNTR (Variable Number of Tandem Repeat). La tècnica –que és ben complexa– consta dels tres passos següents:

Transferiment sobre un suport de nitrocel·lulosa
Hibridació molecular amb ADN monofilamentós marcat (sonda radioactiva)
1)Sovint comença amb una petita mostra inicial. N’hi ha prou amb una petita taca de sang –fins i tot amb l’ADN d’un sol leucòcit!– per obtenir múltiples còpies de la molècula d’ADN, gràcies a l’anomenada tècnica de la PCR o reacció en cadena de la polimerasa.
2)Després es fan migrar en un camp elèctric (per mitjà d’una tècnica d’electroforesi) les còpies de l’ADN fragmentat que es volen estudiar.
3)Posteriorment, quan s’han separat els dos filaments, es fan hibridar amb una sonda radioactiva (molècula d’ADN marcada amb un isòtop radioactiu), la qual cosa permet visualitzar les seqüències d’ADN per mitjà de la fotografia o la llum ultraviolada.
La comparació dels patrons de bandes permet detectar si la mostra estudiada és igual a la d’algun sospitós. L’especificitat d’algunes regions de l’ADN és tan gran que si es comparen regions de dos ADN d’origen diferent i aquestes són iguals es pot afirmar, de fet, que es tracta de l’ADN d’una mateixa persona.
11.1. Fes per escrit el que et proposem a continuació:
a) Defineix els termes genoma, genotip i cariotip.
b) Explica el concepte de malaltia genètica.
c) Explica les diferències entre malaltia genètica, malaltia cromosòmica i predisposició hereditària
11.2. Si un home del grup sanguini A té un fill del grup 0 amb una dona del grup B:
a) Quins són els genotips de tots els individus esmentats?
b) Quins altres fenotips poden presentar-se en la descendència d’aquesta parella?
c) Quina probabilitat hi ha que el fill següent sigui també del grup0? Explica per què.
d) Quina probabilitat hi ha que dos fills d’aquesta parella siguin tots dos mascles i del grup sanguini AB?
11.3. Dóna la teva opinió sobre els quatre casos de paternitat dubtosa plantejats en aquesta taula:
El sistema AB0 està regit per dos gens IA i IB codominants entre si i dominants sobre un tercer: i.
El factor Rh és controlat per un gen amb dos al·lels: D i d
El primer, dominant, determina Rh+; el segon, en combinació homozigòtica, Rh
Presumpte pare
Tingues en compte els fenotips (AB0 i Rh) de la mare, els del fill i els del presumpte pare.
11.4.Un malalt en estat greu necessita un trasplantament de cèl·lules del moll de l’os. Digues amb quines cèl·lules de medul·la d’un hipotètic donant seria més fàcil evitar un rebuig:
El sistema HLA o complex principal d’histocompatibilitat està constituït pels principals antígens de compatibilitat de teixits.
a) les d’un cosí germà;
b) les d’un bessó univitel·lí;
c) les d’un noi que acaba de morir i és donant d’òrgans;
d) les seves mateixes (després d’haver-les extret i guarit mitjançant una tècnica mèdica).
11.5. A l’hospital, dues dones han parit simultàniament. Una vegada traslladades a les seves habitacions respectives, a la primera li lliuren un nen i a la segona, una nena. Tanmateix, la dona a la qual han lliurat el nen dubta que aquell sigui el seu fill, ja que quan encara estava sota els efectes de l’anestèsia li havia semblat que comentaven que havia tingut una nena. Sabem que aquesta dona és del grup AB i el seu marit, del grup 0. El marit de l’altra dona, en canvi, és B, igual que ella. Pel que fa als nadons, el nen és del grup 0 i la nena, del grupA. S’han equivocat, a l’hospital?
11.6. Tot i que és molt improbable en l’espècie humana, es coneix algun cas en què dos bessons són fills de pares diferents. Una dona del grup0 ha tingut dos fills bessons, l’un del gup sanguini A i l’altre del grupB. A més de tenir relacions amb el seu company, que és del grup A, aquesta dona havia mantingut relacions amb un altre home, del qual es desconeix el grup sanguini. Digues, raonant la resposta, quins dels casos següents són possibles i en quines circumstàncies:
a) els bessons són univitel·lins;
b) els bessons són fills del seu company;
c) els bessons són fills de l’altre home; d) cada bessó és fill d’un pare diferent.
11.7. En acabar els estudis, un noi que gaudeix de molt bona salut ha estat seleccionat per entrar a treballar en una important empresa multinacional. Tanmateix, en les proves mèdiques li han detectat el gen de la corea de Huntington i han preferit un altre candidat. El noi creu que és injust, però també està molt preocupat per altres aspectes, com ara la possibilitat de contagiar la seva companya o de transmetre el gen als seus futurs fills.
A més, les proves que ha de fer per a una altra possible feina en una segona empresa les realitza el mateix gabinet de selecció de personal que va fer les de la multinacional i pensa que potser també el descartaran. Com si no n’hi hagués prou, ha de signar el contracte de la seva assegurança de vida (que el banc li exigeix per concedir-li una hipoteca) i la lletra del contracte l’obliga a declarar qualsevol malaltia greu que pateixi. Valoreu aquesta situació en relació amb la salut d’aquesta persona i les diferents conductes que s’hi descriuen.
Aproximadament un 5% dels nounats presenten alguna malaltia o alteració genètica produïda per un gen defectuós. Prop d’un 0,5% dels nounats (i un 50% dels avortaments espontanis) són portadors
Tremolor essencial
Desordre neurològic Càncer de còlon
Malaltia de Gaucher Càncer de pròstata Glaucoma
Malaltia d’Alzheimer
Síndrome de Waardenburg (associada a la sordesa i a ulls de color diferent)
Localització en els cromosomes d’alguns gens relacionats amb les malalties de base hereditària.
Malaltia de Hippel (creixement anormal dels vasos sanguinis)
Càncer de pulmó Càncer de còlon
Tremolor essencial
Calvície i acne
Displàsia diastròfica (malformació en les articulacions)
Melanoma maligne
Malaltia de Tangier
Leucèmia crònica
mieloide
Esclerosi tuberosa
Atròfia espinocerebel·losa (pèrdua de massa muscular i coordinació)
Diabetis
Epilèpsia
Síndrome de Refsum
Diabetis
Síndrome de Williams (retard físic i mental)
Síndrome de Pendred Fibrosi cística o mucoviscidosi Obesitat
Corea de Huntington
Síndrome d’Ellis-van Creveld
Malaltia de Parkinson 2 3 4 5 6 8
Síndrome de Werner
Alteració metabòlica que produeix pèrdua de visió
Alteracions cardíaques en persones joves Diabetis
Neoplàsia múltiple endocrina (hiperactivitat de les glàndules endocrines)
Limfoma de Burkitt (un tipus de càncer limfàtic)
Síndrome de Zellweger
Fenilcetonúria (deficiència de fenilalanina-4-monooxigenasa que provoca retard mental)
d’una aberració cromosòmica. Un tercer grup de persones presenten una predisposició hereditària a veure’s afectades per una malaltia, que en molts casos és deguda a trastorns d’herència multifactorial, en els quals participen nombrosos gens. A les pàgines següents, ens referirem als dos primers grups de malalties.
Càncer de mama
Retinoblastoma (tumor maligne de cèl·lules retinals primitives)
Síndrome de Wilson (alteracions neurològiques)
14
Síndrome d’Angelman (retard mental)
Síndrome de Marfan
17
Proteïna inhibidora de tumors
Càncer de mama
18
Malaltia de NiemannPick (alteració del sistema nerviós)
Càncer de pàncrees
19
Aterosclerosi
Distròfia miotònica de Steinert (atròfia muscular, calvície precoç, cataractes i dèficit intel·lectual)
21 22 X Y 15

Esclerosi lateral amiotròfica
Síndrome poliglandular autoimmune
Leucèmia mieloide crònica
Distròfia muscular de Duchenne
Síndrome de WiskottAldrich
Síndrome de Menkes
Agammaglobulinèmia
Malaltia de Fabry
16
Febre mediterrània
familiar (hereditària)
Policistosi renal
Malaltia de Crohn (problemes intestinals)
20
Immunodeficiència (nens bombolla)
Síndrome de Lesch-Nyhan
Síndrome de Hunter
Dèficit de glucosa-6-Pdeshidrogenasa
Hemofília
Ceguesa als colors
Molècula que actua en la determinació del sexe masculí
Es calcula que més de 3000 gens humans presenten variants al·lèliques (dominants o recessives) causants d’anomalies o de malalties greus. N’hi ha que són autosòmiques i n’hi ha que estan lligades al sexe, perquè el gen es troba situat en el cromosoma X. En aquest cas, lògicament, la incidència del trastorn és molt més alta en els homes que no pas en les dones, les quals, no obstant això, en poden ser portadores. La incidència d’algunes de les malalties més freqüents se situa entre 1/1000 i 1/3000 dels nounats nascuts vius. D’altres, afortunadament, són molt més rares.
S’anomena consell genètic l’assessorament basat en la genòmica, els estudis genealògics i el càlcul de probabilitats que s’ofereix a les parelles amb antecedents familiars de malalties hereditàries, per tal que puguin prendre decisions fonamentades en la genètica.
Algunes de les principals alteracions gèniques humanes
Alteració gènica
Descripció Tipus d’herència Dominant/ recessiu
Acondroplàsia Nanisme per un creixement insuficient en longitud dels ossos.
Albinisme Cabells blancs i pell rosada en extrem per manca de síntesi de melanina.
Corea de Huntington Degeneració nerviosa i demència a partir dels 40 anys.
Daltonisme Diversos trastorns relacionats amb la incapacitat per diferenciar correctament els colors.
Distròfia miotònica de Steinert Degeneració muscular.
Drepanocitosi (anèmia falciforme) Hemoglobina anormal, glòbuls vermells falciformes.
Fenilcetonúria Deficiència mental.
Fibrosi cística o mucoviscidosi
Dificultats respiratòries i intestinals greus.
Incidència aproximada
Autosòmic Dominant 1/10000
Autosòmic Recessiu 1/100000
Autosòmic Dominant 1/20000
Lligada al sexe Recessiu % = 1/15 $ = 1/100
Autosòmic Dominant 1/20000
Autosòmic Recessiu No determinada
Autosòmic Recessiu 1/15000
Autosòmic Recessiu 1/2000
Hemofília Defecte de coagulació de la sang. Lligada al sexe Recessiu % = 1/10000
Miopatia (distròfia) de Duchenne Degeneració muscular greu. Lligada al sexe Recessiu % = 1/5000
Neurofibromatosi Tumors cerebrals i als nervis auditius.Autosòmic Recessiu 1/3000
Retinitis pigmentàriaDegeneració de la retina. Diverses situacions genètiques1/2000
Talassèmies Anèmia hereditària mediterrània. Autosòmic 1/65
Policistosi renal Quistos de ronyó múltiples. Autosòmic Recessiu Recessiu 1/250
A partir de l’estudi de la sang del nadó, es poden detectar algunes anomalies genètiques, com ara la síndrome de Down.
La fotografia mostra una nena afectada per aquesta síndrome.
En un 95% dels casos, la causa de la síndrome de Down és la manca de disjunció dels dos cromosomes 21 durant la formació dels gàmetes. En el 5% de casos restants, la causa és una translocació en els cromosomes d’un dels pares, de manera que un cromosoma 21 (o una bona part d’aquest) s’uneix a un cromosoma més gran, habitualment el 14.
Les alteracions en la dotació cromosòmica de l’individu format a partir d’un zigot que presenta anomalies en l’estructura dels cromosomes o en el seu nombre són molt freqüents. Es presenten en un de cada 200 nounats i són també la causa d’un de cada dos avortaments espontanis.
La major part d’alteracions cromosòmiques provoquen greus disfuncions, com ara retard mental i alguns trets físics particulars que permeten identificar les diferents síndromes (trisomies o monosomies en molts casos). L’any 1959, Jéröme Lejeune, Marthe Gautier i Raymond Turpin van identificar en la trisomia del cromosoma 21 la causa de la més coneguda de les alteracions cromosòmiques: la síndrome de Down. Les radiacions (radioactivitat, llum ultraviolada, raigs X…), determinats productes químics i les infeccions víriques poden induir l’aparició de mutacions cromosòmiques (i gèniques) en els gàmetes. Si un d’aquests gàmetes afectats és el que origina el zigot, el nou individu serà portador de la mutació.
Hi ha, però, un altre factor important: les errades en la repartició dels cromosomes durant la meiosi (les quals també poden augmentar per les causes abans esmentades). Concretament, si durant la meiosi no se separen els dos elements d’un parell de cromosomes homòlegs, aquests aniran a parar a la mateixa cèl·lula filla, i això originarà uns gàmetes amb un cromosoma de més i altres amb un de menys. Si el gàmeta fecundat és el que té un cromosoma de més, s’originarà un zigot portador d’una trisomia; si és el que té un cromosoma de menys, el zigot serà portador d’una monosomia. En ocasions, la trisomia es produeix perquè un dels progenitors és portador de cromosomes units o de translocacions.
L’edat avançada dels pares té una gran influència sobre aquest fet. En el cas de la síndrome de Down, per exemple, la probabilitat que un nadó neixi afectat per la malaltia augmenta progressivament a partir dels 30 anys d’edat de la mare i es dispara si en té més de 45 o 50.
Algunes investigacions fan pensar que, com més avançada és l’edat de la mare, el que augmenta no és la producció de gàmetes anormals, sinó la retenció de fetus anormals, que en la dona jove són avortats espontàniament. L’edat del pare no sembla determinant en la freqüència d’incidència de la síndrome de Down en els nadons, encara que alguns estudis suggereixen que una edat del pare superior als 55 anys sí que hi pot tenir certa influència.
Risc d’aparició de la síndrome de Down
Edat de la mare (anys) Nens afectats (× 1000)
Entre 15 i 29
Entre 30 i 34
Entre 35 i 39
Entre 40 i 44
Entre 45 i 49
Més de 50
Edat de la mare en anys
a) Gràfic del risc d’aparició de la síndrome de Down.
b) Cariotip masculí amb trisomia del cromosoma 21.
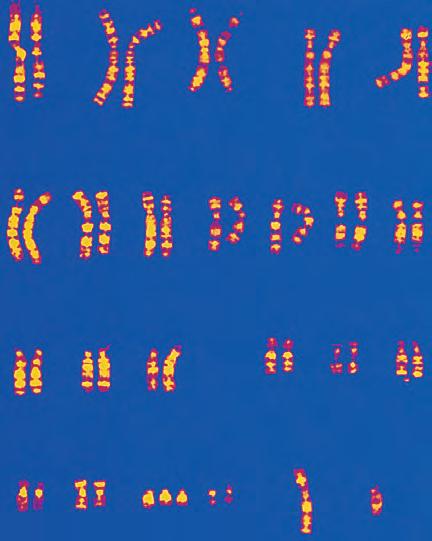
El diagnòstic prenatal
Quan per alguna raó (com ara l’edat avançada de la mare o l’existència d’antecedents familiars) s’estima que hi ha un risc elevat que el fetus sigui portador d’una anomalia genètica, es pot realitzar un diagnòstic prenatal per detectar-la i, si escau, considerar la possibilitat d’interrompre l’embaràs.
Hi ha una gran varietat de tècniques de diagnòstic prenatal. A partir del líquid amniòtic que
Amniocentesi.
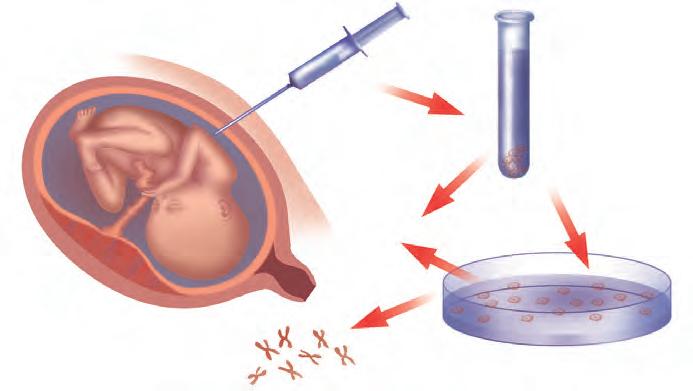
Centrifugació
Fracció líquida
Cèl·lules amniòtiques
Proves bioquímiques
Fotoscopi òptic
envolta el fetus, per exemple, es poden fer proves bioquímiques que detecten defectes metabòlics. O bé, com que en aquest líquid sempre hi ha algunes cèl·lules que s’han desprès del fetus, se’n pot extreure una mostra i cultivar després les cèl·lules que conté, en les quals es poden examinar els cromosomes al microscopi i verificar les possibles aberracions cromosòmiques. Aquest procés s’anomena amniocentesi. També és possible l’anàlisi de la sang fetal, que s’obté del cordó umbilical en un procés d’extracció guiat per ecografia, o, fins i tot, l’anàlisi de mostres de la pell o del fetge del fetus.
De les tècniques més usades actualment, la més moderna és la biòpsia de les vellositats del còrion (una membrana embrionària), que es fa sota control ecogràfic i permet una major precocitat del diagnòstic. Mentre que l’amniocentesi o l’anàlisi de sang s’han de practicar entre les 15 i les 20 setmanes d’embaràs, la biòpsia corial pot fer-se a partir de les 8 o 10 setmanes.
Finalment, en molts casos ja és possible l’anàlisi de l’ADN fetal i la identificació de gens anòmals per mitjà de tècniques d’ADN recombinant.
Les tècniques de diagnòstic precoç redueixen l’angoixa de l’espera i, en cas que s’hagi de recórrer a l’avortament terapèutic, aquest es pot fer més aviat (molt millor des del punt de vista tècnic i psicològic).
Biòpsia de les vellositats del còrion.
Aberració cromosòmica
Tipus de mutació cromosòmica
Síndrome de Down Trisomia del cromosoma 21; en alguns casos rars, el tercer 21 està unit al cromosoma 14.
Síndrome de Patau
Síndrome d’Edwards
Trisomia del cromosoma 13.
Síndrome del miol o del crit del gat
Anomalia Filadèlfia
Síndrome Freqüència d’avortaments espontanis
Incidència aproximada (nascutsvius)
Retard mental greu; empremtes palmars anormals i trets facials característics. Mortalitat elevada a partir dels 16 anys. 1/140 1/700
Llavi leporí i paladar fes; greus defectes neuronals i cardiovasculars; causa de mort prematura.
Trisomia del cromosoma 18. Malformacions generalitzades; gairebé tots moren durant els primers mesos.
Deleció del braç curt del cromosoma 5.
1/5000
1/200 1/10000
Plors molt aguts. Malformacions greus. Mort molt prematura.
Translocació 22-9. Leucèmia aguda crònica.?
1/45000
Entre un 15% i un 20% de les leucèmies en les persones adultes.
Síndrome de Turner
Síndrome de Klinefelter
Manca del cromosoma Y (monosomia del cromosoma X).
La síndrome XXX té efectes similars.
Normalment trisomia XXY, però a vegades XXXY o XXXXY.
Femelles estèrils amb ovaris molt atrofiats i caràcters sexuals secundaris molt poc desenvolupats; baixa estatura. 1/18 1/2500 dones
Mascles estèrils, de testicles i caràcters sexuals secundaris poc desenvolupats i amb trets feminoides (poc pèl corporal, pits augmentats…). ? 1/500 homes
Cromosoma Y supernumerari
Trisomia XYY.
Mascles més alts que la mitjana. Personalitat infantil amb una suposada tendència a l’agressivitat. ? 1/1000 homes
La fibrosi cística o mucoviscidosi és produïda per la presència d’una proteïna anòmala, la CFTCR, codificada per un gen mutat situat en el cromosoma 7. La fibrosi cística, que afecta una de cada 3000 persones, és una de les malalties gèniques més comunes.
11.8. La fibrosi cística és una malaltia que s’hereta com una anomalia determinada per un gen autosòmic recessiu. Un home i una dona sans per a aquest caràcter tenen dos fills amb fibrosi cística i un fill normal.
a) Quina és la probabilitat que el pròxim fill tingui fibrosi cística?
b) El fill no afectat d’aquesta parella està preocupat per la possibilitat de ser heterozigot per a l’al·lel que determina la malaltia. Quina és la probabilitat que ho sigui?
c)Per què la fibrosi cística té conseqüències tan severes sobre la salut si està provocada per una mutació que només afecta tres nucleòtids?
d) Un home i una dona sans tenen tres fills: una noia sana i un noi i una noia malalts de fibrosi cística. Quina és la probabilitat que la noia sana sigui portadora del gen per a la fibrosi cística?
e) Quin és el genotip de la noia sana, el dels seus pares i el dels seus germans?
f) Suposant que la noia sana sigui portadora del gen per a la fibrosi cística, quina probabilitat té de tenir un fill afectat per la malaltia?
11.9. L’acondroplàsia és una anomalia, determinada per un gen autosòmic, que dóna lloc a un tipus de nanisme en l’espècie humana. Dos nans acondroplàstics tenen dos fills, un d’acondroplàstic i un de sa. Tenint en compte això, respon a les preguntes següents:
a) L’acondroplàsia, és un caràcter dominant o recessiu? Per què?
b) Quin és el genotip de cadascun dels progenitors? Per què?
c) Quina és la probabilitat que el proper descendent de la parella sigui sa i quina és la probabilitat que sigui acondroplàstic? (Cal que dibuixis abans l’esquema de l’encreuament.)
11.10. Una malaltia genètica està determinada per un gen autosòmic recessiu. Digues quina de les afirmacions següents és certa i per què:
a) Dos individus afectats mai no poden tenir fills sans.
b) Si els dos membres d’una parella estan afectats, tindran fills afectats i filles no afectades.
c) Si s’aparellen un home afectat i una dona sana, tots els descendents són sans.
d) Si un descendent d’un aparellament determinat presenta la malaltia, almenys un dels seus avis la presentava.
11.11. L’albinisme és un caràcter determinat per un al·lel autosòmic recessiu. Digues quins són els genotips dels progenitors i els dels descendents d’una família en què un home i una dona no albins han tingut cinc fills, quatre de pigmentació normal i un d’albí; i els genotips d’una família formada per un home sa i una dona albina que tenen tres fills sans.
11.12. La corea de Huntington és una malaltia que ve determinada per un al·lel dominant autosòmic H i es manifesta, generalment, després dels 40 anys. Una persona jove de sexe masculí, la qual sap que el seu pare pateix aquesta malaltia, voldria saber:
a)Quina probabilitat té de manifestar la malaltia passats els 40 anys.
b)Quina probabilitat hi ha que un fill seu hereti l’al·lel H
11.13. L’hemofília està determinada per un gen recessiu lligat al sexe. Una dona sana, el pare de la qual era hemofílic, s’aparella amb un home sa. Contesta a les preguntes següents i justifica la resposta:
a) Quina és la probabilitat que tinguin un nen hemofílic?
b) Quina és la probabilitat que tinguin una nena hemofílica?
c) Les persones assenyalades en blau en l’arbre genealògic de sobre són hemofíliques. Quin és el genotip de tots els individus d’aquest arbre?
d) La parella formada pels individus II-4 i II-5 pot tenir fills hemofílics? Amb quina probabilitat?
e) Explica si és correcta l’afirmació següent: «La meitat dels òvuls formats per la dona II-2 són portadors del gen per a l’hemofília.» Raona la resposta.
11.14. El daltonisme és degut a un al·lel recessiu d’un gen que es troba en el cromosoma
X. Suposant el cas d’un noi daltonià, fill de pare i mare amb visió normal, respon a les preguntes següents:
a) Si aquest noi té un oncle daltonià, ¿serà un oncle per part de mare o per part de pare?
b) La mare d’aquest noi espera un fill de sexe masculí. Quina és la probabilitat que sigui daltonià? I si fos una nena?
c) Per què el daltonisme és molt més freqüent entre els homes que no pas entre les dones?
11.15. En una parella, ni l’home ni la dona no són hemofílics. Tanmateix, un oncle patern de la dona sí que ho és. Ara bé, llevat d’aquest, no es coneix cap més antecedent d’hemofília en la seva família, ni tampoc en la del marit. Dibuixa l’arbre genealògic de la família, indica els possibles genotips i calcula quina és la probabilitat que té la parella de transmetre la malaltia als seus fills. Raona la resposta.


Les làmines d’Ishihara constitueixen el test més conegut per diagnosticar el daltonisme. A la làmina de la il·lustració, una persona amb visió normal per als colors hi pot reconèixer el número 35.
11.16. Suposa que un home que té una malaltia determinada i una dona sana tenen vuit fills, quatre nens i quatre nenes. Totes les noies presenten la malaltia del pare, però cap dels nois no la presenta. Explica, raonant la resposta, quin dels següents tipus d’herència té aquesta malaltia:
a)autosòmica recessiva; b)autosòmica dominant; c)lligada al sexe i recessiva; d)lligada al sexe i dominant.
11.17. Observa la taula de peu de pàgina, que mostra alguna de les anomalies més freqüents en l’espècie humana, les quals fan referència al nombre de cromosomes sexuals, i contesta a les preguntes que hi ha a continuació.
a)En vista d’aquests resultats, es podria formular la hipòtesi següent: «En l’espècie humana, el sexe dels individus té a veure amb la presència o absència del cromosoma Y. Altres variables, com ara el nombre total de cromosomes i el nombre d’autosomes, no hi tenen cap influència.» ¿Creus que és una hipòtesi encertada i oportuna, o n’hi hauria alguna altra de més vàlida? Quina? En qualsevol cas, en què s’hauria de basar?
b)Digues què és una anomalia en el nombre de cromosomes i explica algun mecanisme que pugui produir anomalies d’aquest tipus.
11.18. Una dona albina i no hemofílica és filla d’un home hemofílic. Aquesta dona està embarassada d’un home que no és ni hemofílic ni albí i que en la seva família no té cap antecedent pel que fa a aquests trastorns. Acudeix al metge, el qual, gràcies a una ecografia, li diu que tindrà dos fills bessons, un nen i una nena.
a) Quina probabilitat hi ha que tots dos fills no siguin ni albins ni hemofílics?
b) Quina és la probabilitat que tots dos siguin hemofílics, però no albins?
c) I si el pare de les criatures fos hemofílic i albí, quina seria la probabilitat que tots dos fills no fossin ni albins ni hemofílics?
d) I, seguint en aquest darrer cas, quina seria la probabilitat que tots dos no fossin albins, però sí hemofílics?
11.19. L’hemocromatosi és una malaltia hereditària causada per una mutació en un gen del braç curt del cromosoma 6. Observa l’arbre genealògic de sota amb l’esquema dels dos cromosomes 6 tal com es veuen en una determinada fase de la mitosi i contesta a les preguntes següents:
a)Quin és el patró d’herència d’aquest gen?
b)Quins són els genotips dels individus I-1 i III-1?
c)De quina fase de la mitosi es tracta? Raona la resposta.
d)Quines cromàtides tenen idèntica informació genètica?
e)Quina explicació donaries al fet que la salut de les dones amb hemocromatosi empitjora després de la menopausa?


El terme càncer designa un grup nombrós de malalties que afecten òrgans molt diversos. Totes aquestes malalties, però, tenen en comú la seva naturalesa cel·lular; és a dir, el càncer és una malaltia de les cèl·lules, les quals proliferen exageradament a causa de mitosis repetides, sense control, per alteració dels mecanismes de regulació del cicle cel·lular.
Les cèl·lules canceroses ignoren els controls normals de l’organisme i es divideixen sense fre originant una massa informe o tumor. Es diu que el tumor és maligne quan creix ràpidament, envaeix els teixits veïns i, mitjançant el sistema circulatori, es reprodueix en altres òrgans. Les cèl·lules que formen un tumor deriven d’una cèl·lula única que en algun moment (sovint anys abans que es manifesti la malaltia) va experimentar una mutació.
Hi ha dues classes de gens que tenen un paper destacat en l’inici del càncer: els protooncogens i els gens supressors tumorals, aquests darrers tambè dits guardians del genoma. Quan un protooncogèn normal pateix una mutació, es transforma en oncogèn i codifica proteïnes hiperactivadores de la divisió cel·lular. En canvi, els gens supressors (com p16, p53, etc.) codifiquen, en el seu estat normal, proteïnes que inhibeixen el creixement cel·lular. Quan una mutació els deixa inactius, desapareixen els frens que regulen la proliferació cel·lular.
Epigenètica i càncer
Se sap que en el desenvolupament de càncers, si més no en certs tipus, hi ha fenòmens epigenètics implicats. Concretament, en relació amb la metilació de l’ADN. Quan es desenvolupa un tumor es perd prop del 50 % de l’ADN metilat però al mateix temps es produeix la hipermetilació de determinades regions dels gens supressors tumorals.
Una branca incipient de l’epigenètica humana, la farmacoepigenètica s’ocupa de desenvolupar medicaments inhibidors de la metilació de l’ADN, els primers dels quals ja són al mercat.
Desenvolupament d’un dels tipus de càncers humans més freqüents: el càncer de còlon.
Apareix una mutació en un gen determinat
Adenoma de fase 1 (tumor benigne)
Mutació d’un segon gen
Adenoma de fase 2 (intermedi)
Pèrdua d’un gen
Adenoma de fase 3 (tardà)
Mutació d’un segon gen
Carcinoma de còlon (tumor maligne)
Alteracions addicionals
Metàstasi. El càncer s’estén
11.20. Una noia Rh– està embarassada. Explica si això pot representar un risc per a la seva salut o per a la de l’infant. Raona la resposta.
11.21. Una noia presenta una forma de sordesamudesa determinada per un al·lel recessiu. Ni el pare ni la mare són sordmuts. Quina és la probabilitat que un germà de la noia de sexe masculí tingui la mateixa malaltia?
11.22. En l’espècie humana, el grup sanguini MN està controlat per dos al·lels M i N, amb codominància. L’anàlisi de sang practicada sobre una mostra de 208 individus revela 119 individus del grup M, 76 del grup MN i 13 del grup N.
a) Calcula les freqüències dels tres genotips (freqüències genotípiques).
b) Calcula les freqüències dels gens M i N (freqüències gèniques).
11.23. Digues quines proporcions fenotípiques caldria esperar dels encreuaments següents:
a) IAIA × IAIB;
b) IAIA × IBi;
c) IAIA × IAi;
d) IAi × IAi;
e) IAi × IAIB .
11.24. Quina proporció de parelles constituïdes per individus no albins, però amb un primer descendent albí, poden esperar que el segon no ho sigui?
11.25. A les poblacions d’indis de les tribus hopi i zuni, al sud-oest de l’Amèrica del Nord, hi ha una freqüència d’albinisme relativament alta. L’albinisme és determinat per un al·lel recessiu autosòmic a. Un home i una dona pigmentats de la tribu hopi –tots dos amb un pare albí– tenen dos descendents. Quina probabilitat hi ha que tots dos descendents siguin albins? I que ho sigui almenys un dels dos descendents?
11.26. Un home i una dona amb visió normal tenen ambdós el pare daltonià. Determina el genotip de la parella i contesta a les preguntes següents:
a) Quina és la probabilitat que aquesta parella tingui una filla sana?
b) Quina és la probabilitat que tingui un fill daltonià i una filla daltoniana?
11.27. El retinoblastoma és un càncer infantil derivat de les cèl·lules de la retina. Quan és bilateral, és a dir, quan afecta ambdós ulls, és degut a una mutació dominant d’un gen del cromosoma 13. En canvi, quan afecta només un ull és ocasionat per una mutació localitzada a les cèl·lules de la retina. Tenint en compte aquesta premissa, contesta a les preguntes següents:
a)Una mare que durant la infància va patir un retinoblastoma bilateral, quina probabilitat té de tenir un fill que desenvolupi aquesta malaltia?
b)I una mare que durant la infància va patir un retinoblastoma de l’ull dret, quina probabilitat té de tenir un fill que desenvolupi aquesta malaltia?
11.28. L’arbre genealògic de sota mostra amb el color blau els individus que, en una determinada família, han desenvolupat la corea de Huntington. A partir d’aquestes dades, i sabent que la malaltia es manifesta a partir dels 40 anys, digues quina és la probabilitat que l’individu de sexe femení IV-3, que té pocs anys, desenvolupi la malaltia de gran.


11.29. Contesta a les preguntes següents:
a) Quina és la probabilitat que una dona no daltoniana i albina i un home daltonià i no albí tinguin un fill albí i daltonià?
b) Quina probabilitat hi ha que una filla d’aquesta parella, casada amb una home albí i no daltonià, tingui un fill albí i no daltonià?
c) I si el marit de la filla fos albí i daltonià?
11.30. L’arbre genealògic assenyalat amb la lletra a mostra l’herència del color dels ulls en una família. El color blau representa els individus amb els ulls blaus, i el color taronja, els individus amb els ulls marrons. Sabent que aquest caràcter és determinat per un gen autosòmic amb dos al·lels, contesta a les preguntes següents:
a)Quin és l’al·lel dominant?
b)Digues quins dels homes són homozigòtics per al caràcter ulls blaus.
c)Digues quines dones són heterozigòtiques.
d)La parella formada per l’home II-1 i la dona II-2, podria tenir un fill amb els ulls blaus? Per què?
11.31. Els dos arbres genealògics assenyalats amb les lletres b i c mostren l’herència de l’albinisme (arbre b) i de la corea de Huntington (arbre c) en l’espècie


humana. Observa atentament els dos arbres genealògics i després contesta a les preguntes següents:
a) Quin és el model d’herència d’aquestes dues malalties?
b) Quina és, per a l’arbre c, la probabilitat que una parella formada pels individus III-4 i III-5 tingui un descendent afectat de corea de Huntington? ¿És la mateixa probabilitat amb independència del sexe del descendent?
c) En el cas de l’arbre b, quina és la probabilitat que un germà de l’individu IV-3 estigui afectat per l’albinisme? I si fos una germana, ¿tindria la mateixa probabilitat que el seu germà de patir la malaltia?
d) Escriu tots els genotips dels individus de l’arbre b, relatiu a l’albinisme.


1. En el text següent, hi ha diversos errors. Assenyala’ls i explica’n els motius.
En l’espècie humana, la fecundació entre un òvul i un espermatozoide, dues cèl·lules formades per mitosi, dóna lloc a una cèl·lula diploide, el zigot o cèl·lula ou. El zigot té una única còpia per a cadascun dels gens propis de l’espècie, la meitat aportats per l’òvul i l’altra meitat per l’espermatozoide. A partir del zigot, i per successives meiosis, s’obtenen els diferents teixits, constituïts per diversos tipus de cèl·lules, genèticament diferents, que formen l’embrió. El sexe d’aquest embrió ve determinat per l’òvul. Si aquest és portador d’un cromosoma X, l’embrió serà femella.
2. El daltonisme és una de les alteracions de la visió dels colors més comunes. Es tracta d’una anomalia hereditària causada per un gen recessiu lligat al sexe que provoca una falta de cons (cèl·lules encarregades de la visió dels colors) en els ulls dels individus afectats. Tot i que hi ha diversos graus de deficiència de la visió cromàtica, la major part dels daltonians es caracteritzen per la impossibilitat de diferenciar el color verd del vermell. Aquestes deficiències són la base de tots els tests per detectar el daltonisme, com és el cas de les làmines TIDA de dalt. Es tracta de seleccionar quines mones de la filera inferior són iguals a alguna mona de la filera de dalt. Mentre que un daltonià seleccionarà la b) i la c), una persona amb visió normal només seleccionarà la c). Fes la prova i, a més, contesta la pregunta següent, raonant la resposta: per què el daltonisme té una incidència més alta en els homes que en les dones?
3. Els tres arbres genealògics de sota mostren l’herència de tres caràcters hereditaris diferents en l’espècie
humana. En cada cas, només els individus marcats en blau són els que estan afectats. Contesta a les preguntes següents:
a)En el cas A, ¿s’explicaria l’herència del caràcter si fos deguda a un gen dominant lligat al sexe?
b)En el cas B, ¿s’explicaria l’herència del caràcter si fos deguda a un gen autosòmic recessiu?
c)En el cas C, ¿s’explicaria l’herència del caràcter si fos deguda a un gen recessiu lligat al sexe?


4. La fibrosi cística o mucoviscidosi és una de les malalties genètiques més freqüents. Consisteix en un augment de la viscositat de les secrecions mucoses, les quals obstrueixen els bronquis i embussen els canals secretors del pàncrees. La causa d’aquesta malaltia és la mutació en el gen que codifica per a una proteïna específica: la proteïna CFTCR.
A continuació, s’indica un fragment del gen normal (A) i el mateix fragment del gen mutat (B):
A) 3’TTTCTTTTATAGTAGAAACCACAA5’;
B) 3’TTTCTTTTATAGTAACCACAA5’ .
Contesta a les preguntes següents:
a)De quin tipus de mutació es tracta?
b)Quina deu ser la seqüència d’aminoàcids que correspon a aquest fragment de la proteïna normal? I la de la proteïna mutada?
c)La proteïna CFTCR regula el transport d’ionsCl– a través de la membrana de les cèl·lules secretores. Se sap que la permeabilitat al Cl– que aquestes cèl·lules tenen varia en funció de la càrrega elèctrica d’alguns aminoàcids que contenen i influeix sobre la fluïdesa de la secreció mucosa.
Digues de quina manera aquest fet pot explicar l’origen de la malaltia.
d)Quintipusd’herència presenta aquesta malaltia?
5. Aproximadament el 5% de la població és heterozigot per al gen de la mucoviscidosi o fibrosi cística. Dit d’una altra manera, la probabilitat que un individu qualsevol –sense antecedents familiars de muscoviscidosi– sigui heterozigot és 1/20. Digues, en conseqüència:
a) Quina és la probabilitat que una parella qualsevol (sense antecedents coneguts de mucoviscidosi en la família) tingui un fill afectat per aquesta malaltia? Explica com has fet el càlcul.
b) I quina és la probabilitat si el pare o la mare tenen un germà afectat de mucoviscidosi?
c) I si tots dos tenen un germà afectat?
6. Quins són els principals factors de risc de tenir fills portadors d’aberracions cromosòmiques? Quin és el fonament de les tècniques emprades per a la detecció clínica d’aquestes anomalies cromosòmiques? Totes aquestes tècniques, són iguals? Presenten riscos? Avalua la utilitat d’aquestes tècniques en relació amb el risc.
7. Digues, en relació amb el sistema AB0, quins són els genotips dels pares representats en el quadre de sota. Tingues en compte les dades referents al fenotip dels descendents.
Fenotip dels descendents (proporcions)
Fenotip dels pares
a)B × B
b)B × A
8. Consulta la taula de la pàgina 360 i contesta a les preguntes següents:
a) Se suposa que en el cas de la fenilcetonúria la probabilitat de ser heterozigot és, aproximadament, d’1/60. Quina és la probabilitat que una parella qualsevol tingui un fill afectat per aquesta malaltia?
b) Quina seria aquesta probabilitat si l’home tingués un germà afectat de fenilcetonúria? ¿I si el tingués la dona?
c) Estudia l’arbre genealògic de més avall, que correspon al d’una família amb un cas de fenilcetonúria. Digues, justificant la resposta, quina és la probabilitat que els individus III-1 i III-2 (cosins germans) tinguin un descendent afectat per aquesta malaltia en el cas que els individus II-1 i II-5 siguin homozigots.


Grup sanguini
A B AB 0 – 3/4 – 1/4
1/41/41/41/4
1/41/21/4 –
d)B × 0
c)B × AB –1––
Esquema
1.L’enginyeria genètica
2.La tecnologia de l’ADN recombinant
3.Enginyeria genètica i biotecnologia
4.Productes biotecnològics i organismes transgènics
Molècules d’ADN (50000x).
La genètica molecular, que estudia la naturalesa química de l’ADN i els mecanismes de duplicació, transcripció i traducció de la informació genètica en proteïnes, ha fet possible el desenvolupament d’una tecnologia nova, la de l’ADN recombinant o enginyeria genètica. És a dir, la possibilitat d’aïllar fragments d’ADN (gens) i de transferir-los a altres organismes. Aquest fet ens situa a les portes d’una nova era en la relació de l’ésser humà amb la natura. Les tècniques en què es basa aquesta mena d’enginyeria, les possibilitats que s’albiren i els reptes que planteja són alguns dels temes que es desenvoluparan en aquesta unitat didàctica.
Iaixí, doncs, quina és la causa de tant rebombori? I, en primer lloc, en què consisteix l’enginyeria genètica?
La biotecnologia té els seus orígens en la Prehistòria, amb l’obtenció d’aliments fermentats, com ara la cervesa, el formatge, el vi o el pa. En canvi, l’ enginyeria genètica s’inicia després de la consolidació de la genètica, a la segona meitat del segle XX. Es diu que neix l’any 1973.
Dades cronològiques de la biotecnologia i l’enginyeria genètica
Abans del 600 aC Ús dels llevats per elaborar cervesa i vi.
Cap al 400 aC Ús dels llevats per elaborar pa.
Cap al 1521
Els asteques recol·lecten algues lacustres per alimentar-se.
Cap al 1670
A les mines de Río Tinto (Huelva) s’enriqueix el coure amb l’ajut de microorganismes. 1680
Amb l’ajut del microscopi, Anton van Leeuwenhoek observa microbis per primer cop. 1865
Gregor Mendel descobreix les lleis bàsiques de l’herència. 1871
Friedrich Miescher descobreix la nucleïna (ADN). 1873
Louis Pasteur patenta als Estats Units un cultiu de llevats. 1876
Louis Pasteur aconsegueix identificar la funció dels enzims dels llevats en les fermentacions.
1897
Eduard Buchner descobreix que els enzims extrets dels llevats poden transformar la glucosa en alcohol.
1928
Alexander Fleming descobreix l’acció antibiòtica de la penicil·lina.
1944
Oswald Avery i els seus col·legues confirmen que l’ADN és el material hereditari.
Comença la producció de penicil·lina a gran escala, després del treball de purificació d’aquest antibiòtic per part d’Ernst Chain i Howard Florey.
1953
James Watson i Francis Crick descobreixen l’estructura en doble hèlix de l’ADN.
1955-1956
Severo Ochoa descobreix l’ARN-polimerasa i Arthur Kornberg l’ADNpolimerasa. 1961-1966
Marshall Nirenberg i els seus col·laboradors desxifren el codi genètic.
1962
S’inicia l’extracció d’urani mitjançant microorganismes.
1967
Gellert descobreix les ADN-ligases.
Aixafant el raïm per a l’obtenció de vi. Detall d’una pintura mural de la tomba d’un escriba del faraó Tuthmosis IV (segle XV aC).
Recerca transgènica en plantes a l’Institute Nationale pour la Recherche Agricolaire, a Versalles (França).
Pol·linització artificial d’una planta d’enciam ( Lactuca sativa ) amb el pol·len d’una flor modificada genèticament perquè sigui resistent a un herbicida.
1972
Paul Berg obté la primera molècula d’ADN recombinant, tallant i enganxant ADN d’un virus i d’un bacteri.
1973
Primers experiments d’enginyeria genètica amb èxit (de trasplantament d’ADN i de clonació molecular, per Stanley Cohen, Shing Chan i Herbert Boyer).
1975
A partir d’hibridomes, César Milstein obté els primers anticossos monoclonals. Frederick Sanger i els seus col·laboradors enllesteixen les tècniques de seqüenciació de l’ADN.
1976
L’Institut Nacional de la Salut (NIH) dels EUA adopta les normes de conducta per a l’enginyeria genètica.
1977
Es crea Genetech, la primera companyia comercial d’enginyeria genètica.
1978
Hamilton Smith, Daniel Nathans i Werner Arber obtenen el premi Nobel de medicina pel descobriment dels enzims de restricció (iniciat per W. Arber, a partir del 1962).
1980
Primeres patents de microbis obtinguts per enginyeria genètica (als Estats Units i al Regne Unit) i obtenció dels primers ratolins transgènics.
1981-1982
Rècord històric a Wall Street per la sortida a borsa de la companyia de biotecnologia Cetus.
Obtenció d’un ratolí transgènic (Palmiter i Brinter).
Obtenció d’una drosòfila transgènica (Spradling i Rubin).
S’autoritza l’ús mèdic de la insulina obtinguda per enginyeria genètica.
1983
Desenvolupament de la primera planta de tabac transgènica.
1985
El nord-americà Kary Mullis (premi Nobel de química l’any 1993) enllesteix la tècnica d’amplificació de l’ADN o de reacció en cadena de la polimerasa (PCR). Es comercialitza la segona proteïna obtinguda des de 1978 per enginyeria genètica: l’hormona del creixement.
1986-1988
Primeres plantes transgèniques; cromosomes artificials de llevat (yeast) o YAC; vectors per clonar ADN molt llarg.
Aïllament del gen de la distròfia muscular de Duchenne.
Primera patent d’un animal transgènic (un ratolí). Es comercialitza el primer factor sanguini de coagulació obtingut per enginyeria genètica.
1991
Comencen les primeres fases del Projecte Genoma Humà.
1997
Ian Wilmut i el seu equip de la Universitat d’Edimburg obtenen el primer mamífer clònic: l’ovella Dolly.
Directiva de la UE que autoritza la patent de desenvolupaments biotecnològics a partir d’elements aïllats de plantes, d’animals o del cos humà.
2001
Es completa la primera fase del Projecte Genoma Humà: la seqüènciació total (en un 97%) dels 3000 milions de nucleòtids de l’ADN de l’espècie humana.
2003
Síntesi in vitro del genoma dels virus FX174 (5386 parells de bases).
2008
Síntesi, al laboratori (reconstrucció in vitro), del genoma de Mycoplasma genitalium, un procariota senzill amb 582000 parells de bases.
Abús de les lleis de la naturalesa, científics convertits en empresaris o jugar a Déu?
Alguns gens tenen, per naturalesa, un grau considerable de mobilitat; van d’un indret a l’altre del genoma; poden incorporar-se en un genoma i sortir-ne amb l’ajut de petits satèl·lits de repòs, com plasmidis, fags o virus, i també poden viatjar d’un genoma a un altre constituïts en passatgers d’aquestes partícules. Aquestes migracions tenen lloc a gran escala en la natura.
Vistes així les coses, el conjunt de virus i partícules afins es converteix en una flota de transportadors de gens, l’origen probable dels quals s’hauria produït mitjançant l’emancipació evolutiva de gens mòbils procedents de genomes complexos, procariotes o eucariotes. Una vegada els científics aprengueren a valorar aquests fets i a comprendre’n els mecanismes subjacents, la idea d’usar aquesta flota per al transport de determinats gens, escollits a propòsit, brotà de manera espontània: la natura aportava les eines. Així nasqué l’enginyeria genètica, per convertir-se, potser, en una de les tècniques més poderoses que mai hagi desenvolupat la humanitat.
Certament, l’enginyeria genètica evocava un panorama ple de núvols tan ombrívols que els mateixos científics s’espantaren. El juliol del 1974, en una acció sense precedents, un grup d’eminents especialistes declarà una moratòria voluntària de no emprendre cap assaig fins que fos possible valorar-ne els efectes. Tal com era de preveure, aquesta lloable manifestació de prudència i responsabilitat social provocà un considerable enrenou i encengué un debat públic, amb una profunda càrrega emocional. S’escampà el temor a epidèmies incontrolables a escala mundial i a invasions massives de càncer. S’aixecaren acusacions de pretendre «jugar a Déu», «abusar de les lleis de la naturalesa», «traspassar la barrera sagrada de l’espècie» i altres gosadies. Prometeu, Pandora, Frankenstein i altres figures mítiques foren convocades per expressar amb nous termes la desconfiança, profundament arrelada, de la humanitat envers qualsevol coneixement nou o innovació tecnològica. Fent-se ressò dels poderosos corrents que s’havien alçat dins i fora de la comunitat científica, les administracions responsables de l’àrea de la salut posaren el tema sobre la taula i redactaren una legislació que gairebé imposava més precaucions en la manipulació dels microorganismes genèticament modificats que en el tracte amb bacteris i virus més mortífers i temibles. Un cop apagat, aquell furor ha estat substituït per un altre, reencarnació de la febre de l’or. S’han aixecat companyies per explotar la nova tècnica, s’han reclamat patents, molts científics s’han convertit en empresaris i algunes universitats, en socis d’aventures comercials. Tot plegat acompanyat d’un debat llarg i prolix sobre la llibertat de la informació científica i sobre el desinterès de la comunitat científica.
I així, doncs, quina és la causa de tant rebombori? I, en primer lloc, en què consisteix l’enginyeria genètica, o tecnologia de l’ADN recombinant, tal com se’n diu en purisme d’acadèmia? Quins són els seus objectius fonamentals? En teoria, i també en la pràctica, el que es fa és bastant senzill. S’a-
Des de bon començament, l’ús de l’enginyeria genètica ha suscitat polèmica i desconfiança.
¿Es tracta de por davant la innovació tecnològica i el nou coneixement, o bé és més aviat prudència davant els riscos que planteja?
A partir d’una petita mostra de proteïna es pot conèixer la seqüència d’aminoàcids. Això permet identificar-ne el gen entre els d’una genoteca i localitzar-lo amb una sonda. Un cop obtingut el gen, se’l pot inserir en una cèl·lula perquè s’hi expressi la proteïna.
gafa un fragment d’ADN i s’introdueix en una cèl·lula perquè es repliqui, juntament amb el genoma d’aquella i, en determinades aplicacions, s’intenta també que es transcrigui i que es tradueixi.
CHRISTIANDE DUVE, La cèl·lula viva
L’ enginyeria genètica –o encara millor, la tecnologia de l’ADN recombinant – consisteix en la modificació del patrimoni hereditari d’un ésser viu, com ara un bacteri, una planta o un animal, per mitjà de la introducció d’un o més gens procedents d’una altra espècie biològica, sovint ben diferent. El procediment s’assembla a un empelt de gens, del qual resulta una construcció nova; d’aquí prové, precisament, l’ús del terme enginyeria aplicat a la manipulació genètica.
L’enginyeria genètica és filla de l’aplicació dels coneixements adquirits sobre el material hereditari, del qual es va descobrir la possibilitat de manipular-lo a mesura que es va anar coneixent la naturalesa de l’ADN i la manera en què la informació que conté s’expressa en proteïnes.
Així mateix, han estat molt importants alguns coneixements previs, ja disponibles cap a mitjan segle XX, relatius als processos de transferència natural de material genètic en els bacteris (transformació, transducció…). Aquests coneixements s’han pogut utilitzar per traslladar els gens d’una espècie a una altra.
Plasmidi vist a través del microscopi electrònic.
Del gen a la proteïna i de la proteïna al gen
Es determina la seqüència d’aminoàcids
Se sintetitza una sonda d’ADN
Es busca una genoteca d’ADN
Gen
S’insereix en el vector d’expressió
S’introdueix en E. coli o en una altra cèl·lula hoste
L’enginyeria genètica, que es va desenvolupar durant la dècada de 1970 i, especialment, al principi de la dècada de 1980, és ara una realitat.
A més, les seves aplicacions pràctiques no fan sinó augmentar. Aquesta tècnica té unes possibilitats tan grans que és molt difícil imaginar fins a on pot arribar, tant en el domini agroalimentari i ramader com en el camp de la salut i la medicina. Ens trobem al començament d’una de les revolucions culturals més transcendentals que hagi viscut mai la humanitat.
Es considera que l’enginyeria genètica va començar l’any 1973, quan Stanley Cohen, Shing Chan i Herbert Boyer van elaborar la tècnica del trasplantament de gens i de la clonació molecular , que consisteix a introduir a l’interior d’un bacteri (actualment també pot ser una cèl·lula eucariota) un fragment d’ADN aliè perquè s’hi dupliqui.
La clonació permet aconseguir, en poc temps, un gran nombre de còpies. És el primer pas per obtenir després quantitats considerables de la proteïna que el gen codifica. A més, té l’aspecte positiu de poder disposar de moltes còpies d’un gen per estudiar-ne les seqüències i establir genoteques o arxius de gens.
El bacteri Escherichia coli és una de les cèl·lules receptores més utilitzades. El fet que hagi estat molt estudiat i que el seu ADN sigui ben conegut simplifica molt les coses, com també les simplifiquen l’existència de plasmidis i els fenòmens de sexualitat propis del bacteri.
Efectivament, per introduir un gen en l’ADN d’una cèl·lula hoste, cal un vehicle, i per dur a terme aquesta funció s’utilitzen sovint els plasmidis o fragments autònoms d’ADN. A vegades s’usen altres vehicles, com per exemple determinats tipus de virus.
Un aspecte molt important de la tecnologia de l’ADN recombinant, una vegada identificat el gen que es vol transferir, consisteix en la necessitat de tallar l’ADN donant, separar-ne el fragment i, després, inserir-lo en l’ADN receptor. Per fer-ho, s’utilitzen unes endonucleases (els denominats enzims de restricció ) que recorren les molècules d’ADN i les tallen en punts concrets, després que hi hagin localitzat seqüències precises de bases (particulars de cada enzim de restricció). Els enzims de restricció van ser descoberts per Hamilton Smith, Daniel Nathans i Werner Arber, descobriment pel qual van obtenir el premi Nobel de medicina l’any 1978. Els petits fragments que aquests enzims tallen presenten en els dos extrems seqüències monofilament curtes. Són precisament aquests extrems «enganxosos» els que faciliten, posteriorment, la unió de trossos d’ADN d’espècies diferents. Aquesta unió es catalitza per les ADN-ligases.
Bacteri Escherichia coli dividint-se, vist a través del microscopi electrònic. El seu ADN forma una gran molècula (el cromosoma bacterià), però també hi ha petits elements genètics mòbils (els plasmidis) (31x).
«Extrem enganxós»
L’ús dels enzims de restricció i de les ligases per a la manipulació de l’ADN.
GAATTC CTTA A G GAATTC CTTAAG G CTTAA GAATTC CTTAAG AATTC G
«Extrem enganxós»
Els processos de transformació (a) i transducció (b) en enginyeria genètica.
ADN víric
Virus
L’ADN víric entra en la cèl·lula hoste
A banda de la conjugació (unió temporal entre dos bacteris), per mitjà de la qual es transfereixen gens d’una cèl·lula bacteriana a una altra, hi ha dos mecanismes més que permeten la incorporació d’ADN forà per part d’un bacteri: la transducció i la transformació. Tots dos són molt útils en enginyeria genètica.
La transducció es produeix quan un bacteriòfag incorpora part de l’ADN de la cèl·lula hoste al seu ADN, de manera que el pot transportar i introduir en una nova cèl·lula hoste. Són molt útils els denominats fags de transducció restringits (que incorporen regions específiques de la cèl·lula hoste) i els defectius (que incorporen tant ADN de l’hoste que no disposen de prou espai per al propi i, per bé que poden continuar infectant, ja no maten les cèl·lules hoste).
La transformació és el canvi genètic que experimenta un bacteri després d’haver estat exposat a un ADN aïllat provinent d’un altre bacteri (o fins i tot d’una altra procedència) i d’haver-s’hi recombinat (recorda sobre això l’experiment clàssic de Griffith, explicat en les pàgines 304-305). L’ADN transformador més utilitzat en els experiments d’enginyeria genètica és el dels plasmidis.
Gen de la resistència a l’antibiòtic
Plasmidis
Tractament (amb Ca2+) del cultiu per permeabilitzar les membranes bacterianes i permetre l’entrada dels plasmidis
Divisió cel·lular
Cromosoma bacterià
Cèl·lula bacteriana
Replicació de l’ADN víric
A vegades, segments de l’ADN bacterià s’incorporen a l’ADN víric
Transferència del cultiu a un medi amb l’antibiòtic
Replicació autònoma dels plasmidis
Cromosoma bacterià
Els bacteris que han incorporat plasmidis es multiplicaran Els bacteris sense plasmidis moren
L’ADN estrany es recombina amb el del bacteri hoste: es produeix una transducció de gens d’un bacteri a l’altre
Un virus que conté ADN de l’hoste anterior infecta un segon bacteri
Gens procedents de l’hoste anterior
La tecnologia de l’ADN recombinant comporta habitualment les etapes següents:
1. Preparació de l’ADN que es vol clonar. Aquest ADN pot ser: – ADN obtingut per mitjà de la transcriptasa inversa a partir d’un ARNm; – ADN sintètic; – ADN tallat de l’interior d’un genoma per mitjà dels enzims de restricció.
2. «Empelt» sobre un ADN receptor, que s’obre per mitjà d’enzims de restricció, i clonació dels gens. Si, com és habitual, s’ha partit del genoma fragmentat d’una cèl·lula donant, cadascun dels fragments d’ADN s’insereix sobre un plasmidi (ADN receptor). L’ús de plasmidis que contenen gens que confereixen resistència als antibiòtics facilita enormement el reconeixement de les cèl·lules que han incorporat el plasmidi, necessari per no perdre el gen objecte d’estudi en el cúmul de microbis del cultiu. N’hi ha prou de tractar el cultiu amb l’antibiòtic en qüestió: només els bacteris resistents són portadors del gen. La resta són eliminats.
Cultivada adequadament, cadascuna d’aquestes cèl·lules «recombinades» dóna lloc a un clon, és a dir, a una colònia integrada per cèl·lules genèticament idèntiques.
3. Identificació del clon portador del gen seleccionat. Per trobar el clon o els clons que contenen el gen transferit, s’utilitzen còpies radioactives (marcades amb radioisòtops) del gen en qüestió, que es fixen selectivament sobre l’ADN que els és complementari.
4. Expressió del gen i cultiu a gran escala. No n’hi ha prou que la cèl·lula receptora tingui un gen d’una procedència determinada (per exemple, humana). Cal que s’hi expressi, és a dir, que la cèl·lula receptora produeixi la proteïna per a la qual codifica aquell gen.
Són necessàries, a més, seqüències particulars d’ADN (operador, promotor…), veritables senyals genètics que puguin «ser entesos» per la cèl·lula receptora i que habitualment s’incorporen per mitjà d’un nou plasmidi. Finalment, una vegada s’ha obtingut aquest clon operatiu, cal cultivar-lo en un tanc de fermentació per obtenir quantitats significatives de la proteïna desitjada.
Cèl·lula donant que conté els gens a aïllar
Les diferents etapes de la clonació de l’ADN. El gen a transferir és inserit –amb l’ajut d’enzims de restricció i ligases– a l’interior d’un plasmidi bacterià (en la il·lustració d’ E. coli ). Els bacteris són cultivats de nou i, mitjançant sondes radioactives, es localitzen els clons que contenen els gens a clonar. Després, aquests clons són cultivats a gran escala, on es formaran grans quantitats de bacteris recombinants que permeten obtenir la proteïna expressada pels gens clonats.
Bacteri Escherichia coli
Cromosoma bacterià
Fragmentació del genoma (enzim de restricció)
Integració dels gens a clonar en els plasmidis (ligasa)
Introducció dels plasmidis recombinats dins els bacteris
Cultiu dels bacteris (formació d’un banc de gens) i identificació del clon que conté el gen que interessa aïllar (gràcies a una sonda radioactiva)
Cultiu a gran escala
Gens aïllats A B
Plasmidi
Obertura dels plasmidis (enzim de restricció)
A
B Clon C
Producció i obtenció de la proteïna codificada per a aquells gens
Bioreactor que s’utilitza per a l’experimentació de penicil·lines sintètiques.
En el procés de producció s’usen bioreactors amb cabuda per a milions de litres.
S’anomena biotecnologia l’aprofitament dels recursos biològics per mitjà del control o la modificació dels organismes, com ara microbis, plantes o animals.
En un tanc de fermentació o bioreactor, es controlen l’entrada d’aire, la temperatura i la quantitat de nutrients dels quals s’alimenten els microbis.
Dipòsit per a àcids i àlcalis per regular el pH
Sobreeixidor
Sortida de l’aigua de refrigeració
Filtre d’aire Aire
Extracció de productes
La biotecnologia és molt antiga. Per exemple, les tècniques necessàries per a l’elaboració de pa o de begudes alcohòliques es coneixen des de fa milers d’anys.
Avui dia, però, les innovacions i els descobriments científics de la biotecnologia moderna es fonamenten en processos industrials basats en els desenvolupaments tecnològics més avançats. La història de la penicil·lina, un antibiòtic produït pel fong Penicillium notatum , és prou il·lustrativa d’aquest fet. Des del seu descobriment, l’any 1928, per Alexander Fleming, fins a la seva producció massiva al principi de la dècada de 1940, va transcórrer més d’un decenni ple d’innovacions. Els científics i tecnòlegs aconseguiren varietats de Penicillium que produïen centenars de vegades més penicil·lina, i el seu cultiu en dipòsits gegantins ( bioreactors ) va permetre aïllar l’antibiòtic purificat. El desenvolupament de l’enginyeria genètica, que permet manipular els gens dels organismes, ha situat la biotecnologia en una nova frontera. I és que l’enginyeria genètica i la biotecnologia comportaran un canvi substancial en les relacions de l’ésser humà amb la natura, en una proporció comparable, com a mínim, al descobriment de l’agricultura i la ramaderia.
Camisa refrigeradora
Sistema de mescla
Nutrients Recull de mostres Entrada de l’aigua de refrigeració
Al llarg dels segles, l’ésser humà ha efectuat una selecció empírica de les plantes i dels animals domèstics que li ha permès de millorar-ne les races. Després, el desenvolupament de la genètica féu possible una millora molt més gran basada en una planificació més precisa de la selecció i la hibridació, alhora que se seguia un procés semblant en l’aplicació empírica dels microorganismes emprats en la fabricació d’aliments (pa, formatge, derivats fermentats de la llet, begudes alcohòliques, etc.). Ara és l’hora de la biotecnologia basada en l’enginyeria genètica.
La introducció de gens forans en el nucli d’una cèl·lula vegetal requereix, per ser operativa, que els gens s’incorporin amb normalitat al material genètic del nucli cel·lular, cosa que es va aconseguir per primera vegada l’any 1986. Com a vector, es va utilitzar un plasmidi procedent del bacteri infecciós Agrobacterium tumefaciens , que en moltes plantes cultivades causa un càncer en el coll de l’arrel.
Convenientment modificat i desproveït dels seus efectes cancerígens, l’esmentat plasmidi es fa servir per transferir gens diversos a totes les plantes susceptibles de ser atacades per l’ Agrobacterium . Fins ara s’han obtingut varietats transgèniques en tres dotzenes llargues d’espècies (col, colza, cotó, meló, patata, remolatxa, soia, tabac i tomàquet, entre altres), que incorporen resistències diverses (a determinats paràsits, a algun insecticida…) o que milloren la seva perdurabilitat i conservació.
En el futur, segurament es podran incorporar altres gens que permetin controlar la maduració dels fruits o que millorin la resistència dels cultius a les condicions climàtiques i edàfiques, com també als insecticides i fungicides. També es podrà augmentar el valor nutricional dels productes vegetals i millorar-ne l’aspecte amb vista a la seva comercialització.
La fusió dels denominats protoplastos (cèl·lules vegetals desproveïdes de la membrana de cel·lulosa) també té unes possibilitats molt grans. És una forma ràpida d’obtenir híbrids que permetin agrupar les característiques de dues espècies ben diferents. Per mitjà de tècniques de cultiu de teixits, es fa créixer la cèl·lula híbrida resultant de la fusió fins a produir una planta adulta.
Tanmateix, el repte principal que hi ha a l’horitzó, i sobre el qual ja fa molts anys que es treballa, és la transferència a les plantes no lleguminoses (els cereals, per exemple) de determinats gens bacterians que permeten fixar el nitrogen (com ara els gens nif dels Rhizobium ). Això tindria una gran importància econòmica i mediambiental, perquè es podria disminuir el nivell de nitrats i nitrits que contaminen les aigües i es produirien efectes positius pel que fa a la salut i l’eutrofització.
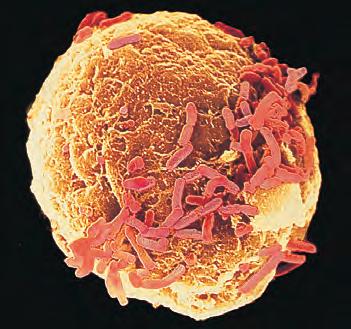
Les primeres plantes transgèniques obtingudes (canya de sucre, col, colza, cotoner, meló, patatera, tabac, tomaquera i soia) eren totes sensibles a l’Agrobacterium tumefaciens. Els gens transferits els atorguen resistència a un virus, a un insecte paràsit i a un herbicida, i també fan que es conservin millor.
a) Algunes plantes transgèniques incorporen gens que les fan més resistents a les malalties o a altres estralls.
b) La capacitat infecciosa dels plasmidis d’ Agrobacterium s’utilitza, una vegada eliminada la seva acció cancerígena, per introduir gens forans en les plantes susceptibles de ser infectades per aquest bacteri (1500x).
c) Els protoplastos permeten multiplicar in vitro els vegetals (450x).
Agrobacterium tumefaciens
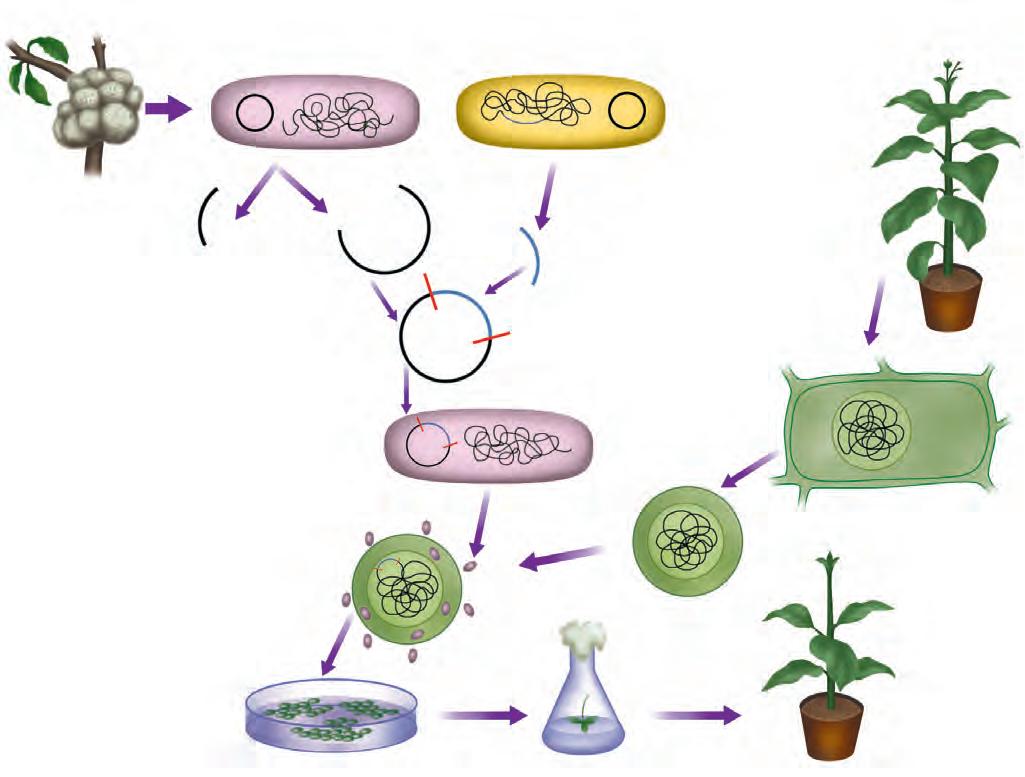
Plasmidi «Ti»
Gens tumorals
Bacillus thuringiensis
— Escissió per enzims de restricció —
Gen «insecticida»
«Empelt» del gen
Reintegració del plasmidi recombinat dins l’agrobacteri
Infestació de protoplastos amb l’ajuda dels bacteris modificats
Protoplastos
Diferents tipus de cèl·lules obtingudes després de la fusió de protoplastos
Protoplast
Planta de tabac que sintetitza el seu insecticida
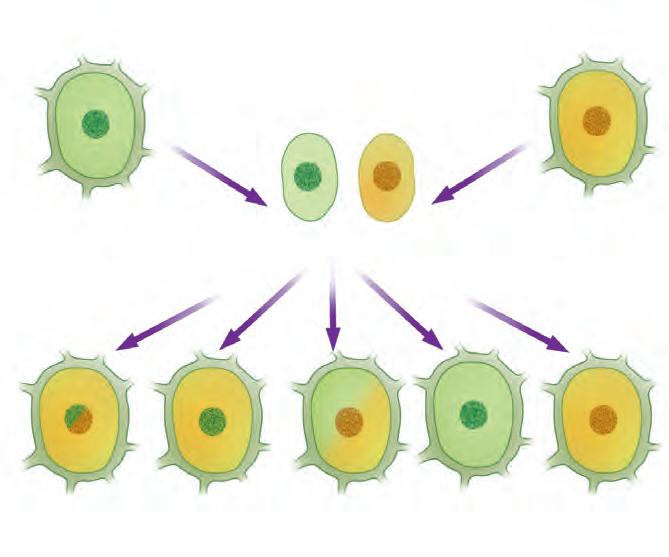
1: poc estables
4 i 5: estables 2 i 3: generalment estables
L’ús de les possibilitats infeccioses dels Agrobacterium ha permès d’obtenir les primeres plantes transgèniques.
La fusió dels protoplastos origina unes cèl·lules híbrides que només conserven una part de les característiques de les cèl·lules originals.
Nitrogen gasós
Molècules d’amoni


Nitrogen gasós de l’aire
Energia de la planta + ions hidrogen
Energia de la planta + ions hidrogen
Enzim nitrogenasa
Ions hidrogen + energia
Molècules d’hidrogen eliminades només en cas que no hi hagi hidrogenasa
Ions hidrogen + energia
Molècules d’hidrogen eliminades només en cas que no hi hagi hidrogenasa
Fixació industrial en la indústria de fertilitzants
Enzim hidrogenasa
Els bacteris fixen el nitrogen
Fixació per les descàrregues elèctriques
Residus i cadàvers animals
Residus i cadàvers vegetals
Proteïnes
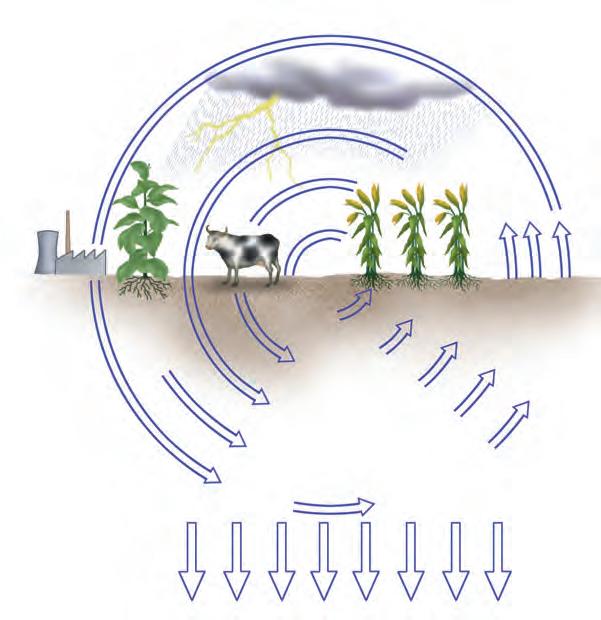
3.2. Altres formes d’obtenir plantes transgèniques
Els microbis alliberen el nitrogen gasós a l’atmosfera
Filtració de compostos nitrogenats dins la terra
Quan van començar els estudis d’enginyeria genètica (al principi de la dècada de 1980) per tal d’introduir gens forans en els vegetals i obtenir plantes modificades genèticament (transgèniques), es feien servir gairebé sempre bacteris del gènere Agrobacterium . Tot i que s’aprofita la gran capacitat infecciosa d’aquests microbis, el mètode té limitacions. De fet, els Agrobacterium tenen dificultat per infectar vegetals monocotiledonis, com ara el blat, l’arròs o el blat de moro, que tenen un gran interès econòmic.
Per això, actualment s’utilitzen altres mètodes, com ara la introducció d’ADN en protoplastos. Aquest procés es realitza mitjançant microinjecció o bé emprant productes permeabilitzadors de la membrana, com ara el polietilenglicol, o impulsos elèctrics d’alt voltatge.
Ara bé, des de l’any 1987, any en què fou construït el primer accelerador específic, un dels mètodes més emprats per a l’obtenció de plantes transgèniques és la biobalística , que consisteix a bombardejar cèl·lules vegetals amb micropartícules. De fet, es tracta de micropro-
En el cicle biogeoquímic de l’element químic N, el nitrogen atmosfèric (N2) només pot ser utilitzat per aquells bacteris que disposen dels gens de les nitrogenases (bacteris fixadors del nitrogen), com ara els Rhizobium . La possibilitat de transferir aquests gens a les plantes conreades tindria una importància positiva enorme en termes econòmics i mediambientals.
Els cultius de més importància econòmica (com ara el blat, en la fotografia) són objecte d’importants recerques per obtenir-ne varietats transgèniques millorades. Actualment, es disposa ja d’algunes races manipulades per biobalística.
jectils amb el cor d’or o de tungstè (elements químicament inerts) i recoberts de l’ADN que es vol inserir. Fortament accelerats en un accelerador de partícules, aquests projectils surten tan rabents que travessen la paret i la membrana cel·lular sense fer malbé la cèl·lula. Posteriorment, s’obtenen els vegetals sencers per cultiu de teixits.
Malgrat la baixa proporció de cèl·lules bombardejades que de fet resulten transformades genèticament, la biobalística és en l’actualitat la millor opció per obtenir varietats transgèniques d’arròs, blat de moro, blat, canya de sucre, espàrrec, melca, papaia o soia.
Els microorganismes recombinants són microbis el patrimoni genètic dels quals ha estat manipulat per enginyeria genètica; els animals transgènics són aquells que han incorporat un gen d’una altra espècie, com ara la humana. El mitjà clàssic per obtenir-los consisteix a introduir per microinjecció un gen forà en un òvul fecundat, que és reimplantat en l’úter d’una femella d’adopció. Després del període de gestació, aquesta femella donarà a llum l’animal transgènic. Ateses les característiques de la reproducció dels animals superiors, la tecnologia de l’ADN recombinant encara és molt incipient en zoologia. Tanmateix, l’any 1982 la investigació en aquest domini va produir un dels primers resultats espectaculars: l’obtenció de ratolins gegants, portadors del gen humà de l’hormona del creixement. Des d’aleshores, s’han obtingut ovelles, vaques, porcs i conills transgènics, i també algunes espècies de vertebrats inferiors.
La investigació amb relació als animals transgènics aporta millores importants en la producció (de carn, de llet…) i en la resistència a les malalties. També pot proporcionar models d’estudi per a la investigació de malalties humanes i facilitar l’obtenció de productes farmacèutics a partir de la sang d’aquests animals. Així, per exemple, ja s’utilitzen ovelles transgèniques, amb els corresponents gens humans, per obtenir alguns dels factors de coagulació que manquen als hemofílics (especialment els factors VIII i IX). Alguns d’aquests productes es poden trobar també en la llet, d’on encara són més fàcils d’extreure; d’aquí l’interès que els gens transferits s’expressin en cèl·lules de la glàndula mamària. Aquesta mena d’ovelles i porcs transgènics que proporcionen proteïnes d’interès farmacològic són autèntics bioreactors vius.
L’ovella Dolly i els animals clònics
El 22 de febrer de 1997, els investigadors escocesos de l’equip de Ian Wilmut van donar a conèixer el desenvolupament experimental d’un animal obtingut per clonació: l’ovella Dolly. S’anomena clonació el procés que té com a resultat la formació d’un organisme que posseeix un patrimoni genètic idèntic a un altre. Dolly –el primer mamífer gran obtingut per clonació– va ser el resultat de la transferència del nucli d’una cèl·lula donant diferenciada a un ovòcit no fecundat i desproveït experimentalment de nucli, el qual posteriorment fou implantat en una femella portadora. Precisament, la novetat del procés d’obtenció de l’ovella Dolly està en el fet que la cèl·lula de la qual prové és una cèl·lula diferenciada o especialitzada, procedent d’un teixit concret (la glàndula mamària) d’un animal adult. Fins aquell moment se suposava que només es podien obtenir animals clònics a partir de cèl·lules no especialitzades procedents d’embrions.
Si bé la tècnica de Wilmut i dels seus col·legues no és nova, sí que ho és la manera d’evitar els problemes que planteja l’alt grau de control a què estan sotmeses les cèl·lules dels mamífers. Els investigadors empraren l’estimulació elèctrica de l’ovòcit i una mena d’hibernació de les cèl·lules embrionàries (per cultiu en un medi pobre) per interrompre a voluntat el seu cicle cel·lular normal. Mentre que en els animals inferiors la clonació experimental no presenta grans problemes, en els vertebrats –i, especialment, en els mamífers– les dificultats són tan grans que bona part dels qui ho havien intentat en els darrers cinquanta anys hi van desistir. De fet, la clonació es basa en la idea del biòleg alemany Hans Spemann, el qual, l’any 1938, va suggerir de prendre un ovòcit per utilitzar-lo com a entorn per a l’expressió dels gens continguts en un altre nucli. Però no va ser fins l’any 1981 que científics de la Universitat de Ginebra van obtenir tres ratolins de laboratori clònics; la tècnica consistí a introduir el material genètic d’una cèl·lula embrionària en l’òvul d’una femella fecundada.
A hores d’ara, l’envelliment prematur que ha experimentat Dolly planteja dubtes sobre la conveniència d’utilitzar cèl·lules diferenciades en la clonació.
En qualsevol cas, després de l’ovella Dolly foren clonats altres mamífers (vedells, porcs, simis, etc.).
La clonació suscita temors, però tanmateix obre una porta a un panorama d’aplicacions prometedor. La ramaderia podria beneficiar-se d’aquestes tècniques per aconseguir animals clònics a partir dels exemplars més productius o més resistents a determinades malalties. En el futur, els animals clònics poden possibilitar grans avenços en medicina, tant en el coneixement d’algunes malalties com en el seu tractament; per exemple, per mitjà de l’obtenció d’animals que produeixin proteïnes amb característiques humanes que esdevinguin teràpies per a malalties fins ara incurables.
La ramaderia tradicional es basa en la selecció artificial dels animals que presenten els caràcters més útils (producció de carn, de llet, de llana, etc.). Les noves tecnologies permeten anar encara més lluny.
Esquema de la clonació de l’ovella Dolly.
Ovella A
Ovella blanca gestant
Cultiu de cèl·lules de glàndula mamària
Biòpsia d’una glàndula mamària
Recollida dels ovòcits en metafase II de la meiosi
Cromosomes de l’ovòcit (n cromosomes)
Ovella B
Ovella de cap negre
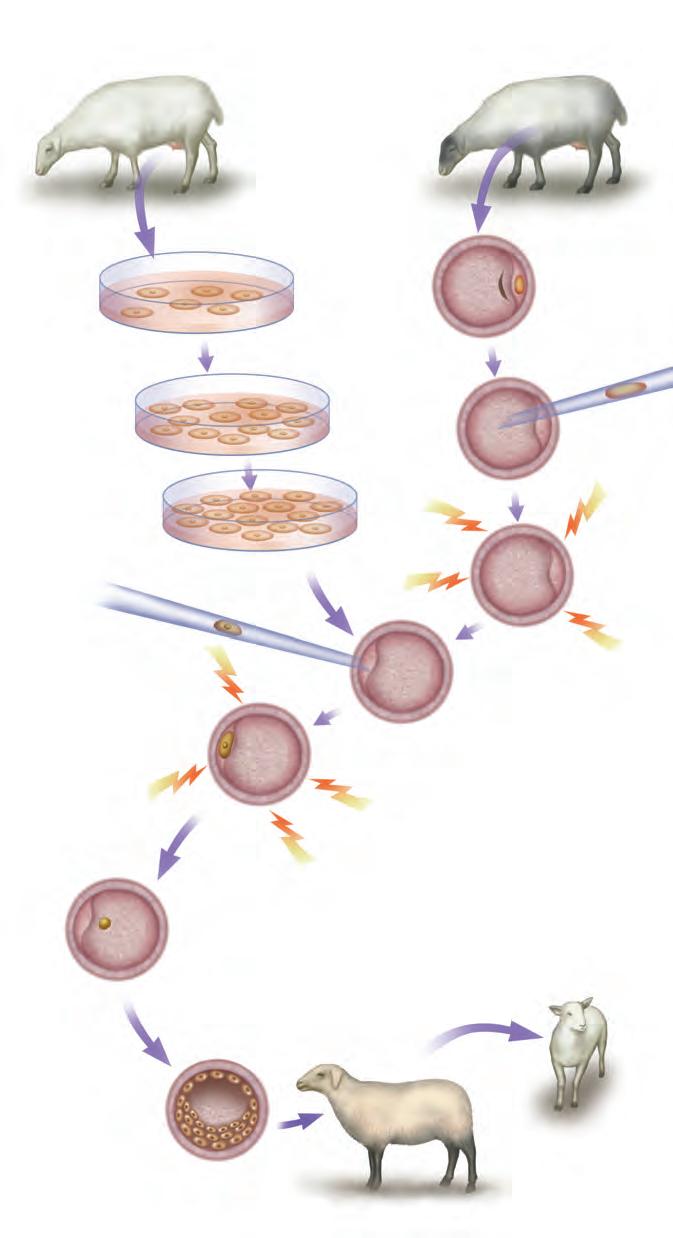
Glòbul polar (n cromosomes)
Cultiu durant cinc dies en un mitjà pobre
2n cromosomes
Cèl·lules de glàndula mamària en repòs
Activació elèctrica
Les dues cèl·lules es posen en contacte
Enucleació de l’ovòcit
Embrió al cap de sis dies
Per obtenir l’ovella Dolly, els científics van introduir sengles nuclis de cèl·lula mamària en 277 òvuls enucleats. D’aquests òvuls en van sobreviure 29, els quals foren implantats en 13 ovelles. Finalment, una d’aquestes ovelles va quedar embarassada i va néixer l’ovella Dolly.
Activació elèctrica de l’ovòcit
Dolly. Tots els seus gens són de l’ovella A, per tant n’és un clon.
Ovella C Implantació en l’úter d’una tercera ovella «gestadora» que farà de «mare adoptiva» o «mare de lloguer» (gestació: cinc mesos)
3.4. Recerques farmacològiques, models animals i teràpia gènica
Com acabem de veure, els animals transgènics poden ser emprats per produir medicaments. També són útils en l’obtenció d’òrgans animals per a trasplantaments, la qual cosa suscita grans polèmiques, com molts altres aspectes de l’enginyeria genètica.
Els defensors d’aquests procediments argumenten que la disponibilitat d’òrgans humans per a trasplantaments sempre serà un factor limitat i que, per tant, cal preparar-se per als xenotrasplantaments (trasplantaments amb òrgans animals). De fet, en alguns països com ara el Regne Unit, hi ha granges d’animals transgènics, portadors de genshumans.Entrealtres aplicacions, aquests animals haurien de servir per reduir o eliminar la reacció de rebuig que es produeix quan el cos entra en contacte amb proteïnes i teixits estranys.
Una altra de les aplicacions més clares dels animals transgènics és la teràpia gènica, tot i que, desafortunadament, encara és llunyana. Actualment, en molts dels laboratoris que investiguen malalties humanes s’utilitzen models animals , com ara els ratolins transgènics, en els quals s’han introduït gens causants de malalties humanes. Per exemple, si se sap que un gen anòmal té propietats cancerígenes, es pot inocular en una estirp de ratolins i estudiar de quina manera els seus organismes desenvolupen la malaltia i sota quines circumstàncies. Com a exemple, una de les causes de la manca d’una vacuna efectiva contra el virus de la sida és l’absència de models animals. No es disposa d’animals de laboratori que puguin experimentar la malaltia.
El ratolí és un organisme model força adequat, perquè, a més de la facilitat de cria i reproducció que té, és relativament fàcil obtenir-ne ( in vitro ) cèl·lules modificades genèticament. Posteriorment, aquestes cèl·lules possibiliten l’obtenció d’animals transgènics.
S’entén per teràpia gènica la transferència d’un ADN forà, obtingut amb tècniques d’enginyeria genètica, a les cèl·lules d’un organisme per tal de compensar les deficiències o mancances associades a una malaltia hereditària o a un trastorn corporal de base genètica.
Ara com ara, la teràpia gènica es troba encara en fase d’investigació. Les dificultats principals que planteja són la necessitat que el nou material genètic arribi a un nombre molt elevat de cèl·lules i l’expressió correcta del gen terapèutic. Tanmateix, les malalties hereditàries ocasionades per la mutació d’un gen en concret són les més susceptibles d’una solució futura per mitjà d’aquesta tècnica.
La possibilitat d’obtenir proteïnes humanes a partir de la llet d’animals transgènics és una de les finalitats que persegueix la recerca farmacològica en enginyeria genètica.
L’any 1995 es va seqüenciar el primer genoma (o conjunt de gens) d’un organisme cel·lular, el del bacteri Haemophilus influenzae. Actualment, es coneixen les seqüències gairebé completes d’unes desenes de bacteris i virus, el del llevat Saccharomyces cerevisiae i el d’uns quants organismes superiors. El coneixement de la seqüència del genoma només és un primer pas, encara que molt transcendent, ja que obre les portes a la recerca d’aspectes tan importants com ara la identificació dels gens i la seva funció. Aquests aspectes constitueixen l’objecte d’estudi de la genòmica, una nova ciència que influirà en gairebé tots els camps de la biologia i la medicina, però també en el desenvolupament de les ciències socials i econòmiques. De manera més o menys immediata, la genòmica permetrà identificar els gens associats a moltes malalties, fer un diagnòstic precoç d’aquestes malalties i avançar en el seu tractament.
Primers genomes d’organismes superiors seqüenciats
Organisme Any Parells de nucleòtids (en milions) Gens suposats
Drosophila melanogaster
Caenorhabditis elegans
Arabidopsis thaliana
Ésser humà
1996 120000000 13500
199897000000 19100
2000 115000000 25500
2001 3200000000 30000/40000
A més, gràcies a l’aplicació farmacològica de la genòmica (farmacogenòmica) serà possible saber per què per a unes persones és eficaç un medicament determinat i en canvi per a d’altres ho és més un medicament alternatiu. Això permetrà una medicació molt més precisa i personalitzada. A mitjà termini les conseqüències seran enormes, tan grans que resulta impossible avaluar-ne l’abast.
Clonació i cèl·lules mare
Quan es parla de clonació, sovint es confonen dos processos diferents: la clonació reproductiva i la clonació terapèutica. La legislació internacional prohibeix expressament la primera en l’ésser humà, ja que té per finalitat l’obtenció d’individus genèticament idèntics al donador del nucli implantat en l’òvul prèviament enucleat i induït a desenvolupar-se fins a un individu adult.
En canvi, la clonació terapèutica té per finalitat la conservació de cèl·lules mare, és a dir, de cèl·lules embrionàries de pocs dies que encara no s’han especialitzat i que mitjançant una estimulació adequada poden transformar-se en qualsevol teixit o òrgan. En els darrers anys s’ha obert la possibilitat d’obtenir cèl·lules mare a partir de cèl·lules especialitzades. La generació i l’ús de cèl·lules mare té a veure amb la capacitat d’«esborrar» instruccions epigenètiques «velles» i imprimir-ne de noves de manera eficaç i controlada. Actualment s’investiga l’ús de cèl·lules mare per curar lesions i malalties com ara cremades, infarts, leucèmies, etc.
Les primeres etapes d’aquest procés són possibles, però és difícil fer que les cèl·lules mare es diferencïin a voluntat de manera específica, per exemple en cèl·lules epitelials o musculars. La clonació terapèutica serveix, doncs, per obtenir i conservar embrions clònics (amb la mateixa dotació genètica de l’individu malalt), però no pas amb finalitats reproductives, sinó per obtenir-ne teixits que no provoquin rebuig per part del sistema immunològic del malalt.
L’enginyeria genètica i la biotecnologia també presenten importants aplicacions, actuals i de futur, en el domini mediambiental. Per exemple, avui dia s’utilitzen microorganismes recombinants (és a dir, obtinguts per enginyeria genètica) capaços de viure en medis amb presència de metalls pesants, altament tòxics, per eliminar aquest tipus especialment greu de contaminació.
D’altra banda, alguns bacteris capaços de digerir hidrocarburs, com ara determinades pseudomones, s’utilitzen des de fa molts anys per combatre les marees negres i reduir els danys dels vessaments de petroli. Atès que les pseudomones tenen la limitació que cada espècie o varietat només ataca un tipus d’hidrocarbur, per mitjà de tècniques d’enginyeria genètica s’intenta obtenir estirps de pseudomones capaces de digerir-ne una gran varietat (el petroli, per exemple, n’és una mescla ben rica).
Els microorganismes recombinants s’utilitzen en la mineria per obtenir metalls pesants.
Així mateix, els microorganismes tenen un paper important com a descomponedors de la matèria orgànica, i per això s’utilitzen en molts processos de depuració (d’aigües residuals, per a l’obtenció de biogàs…).
El desenvolupament de la biotecnologia tracta de millorar el rendiment d’aquests processos, mentre que l’enginyeria genètica investiga com fer més eficaces les estirps de microbis recombinants.
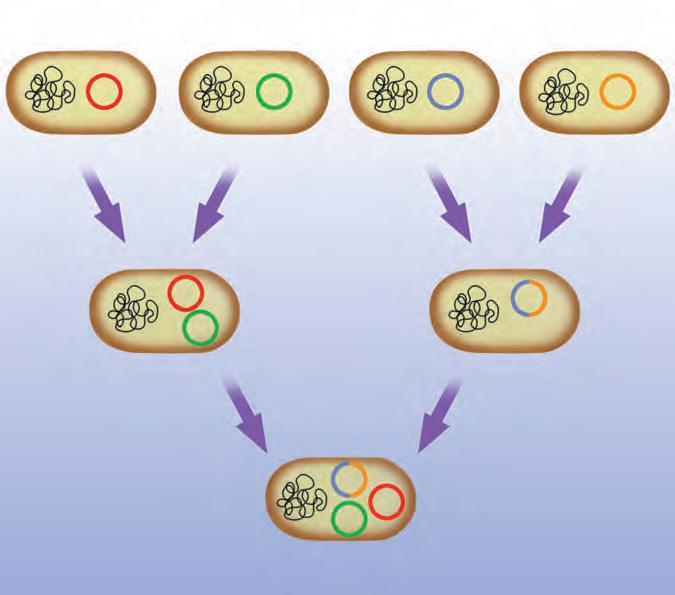
Esquema de la manipulació genètica de pseudomones per obtenir una estirp que digereixi alhora els quatre components principals del petroli: xilens, naftens, octans i càmfores.
Els gens ( xyl, nah, oct i cam ) que confereixen aquesta capacitat es troben en quatre plasmidis diferents. Com que els plasmidis que contenen cam i oct no poden coexistir en la mateixa cèl·lula, prèviament ha calgut fusionar-ne els gens.
Les cèl·lules humanes produeixen la insulina en el pàncrees a partir d’un precursor codificat per un ARNm específic: la preproinsulina. D’aquest precursor, se n’eliminen posteriorment els fragments que sobren (el C i el senyal).
La insulina produïda per enginyeria genètica s’obté a partir de dos fragments d’ADN de síntesi química que s’insereixen en dues estirps diferents de bacteris. Un bacteri produeix el fragment A i l’altre el B. Posteriorment, els dos fragments s’uneixen químicament i s’obté una insulina idèntica a la natural.
Insulina obtinguda per enginyeria genètica
Per bé que es troba tot just al començament, l’enginyeria genètica ja ha donat alguns fruits, i algunes de les seves aplicacions són una realitat.
Fins ara s’ha comercialitzat una dotzena llarga de molècules obtingudes d’aquesta manera, amb unes vendes anuals que generen, a escala mundial, guanys molt importants.
Entre les molècules obtingudes a partir de microorganismes recombinants, tenim l’ interferó , amb una funció estimulant del sistema immunològic; la vacuna contra el virus de l’hepatitis B , i hormones com ara la insulina (des del 1982, la primera molècula obtinguda per enginyeria genètica que es comercialitza) i l’ hormona del creixement , que fan possible tractar de manera eficaç aquelles persones que pateixen malalties per dèficit: la diabetis, en el cas de la insulina, i el nanisme, en el de l’hormona del creixement.
Així mateix, a partir d’animals transgènics es comença a disposar de factors de coagulació de la sang per al tractament d’una altra malaltia per dèficit, l’hemofília.
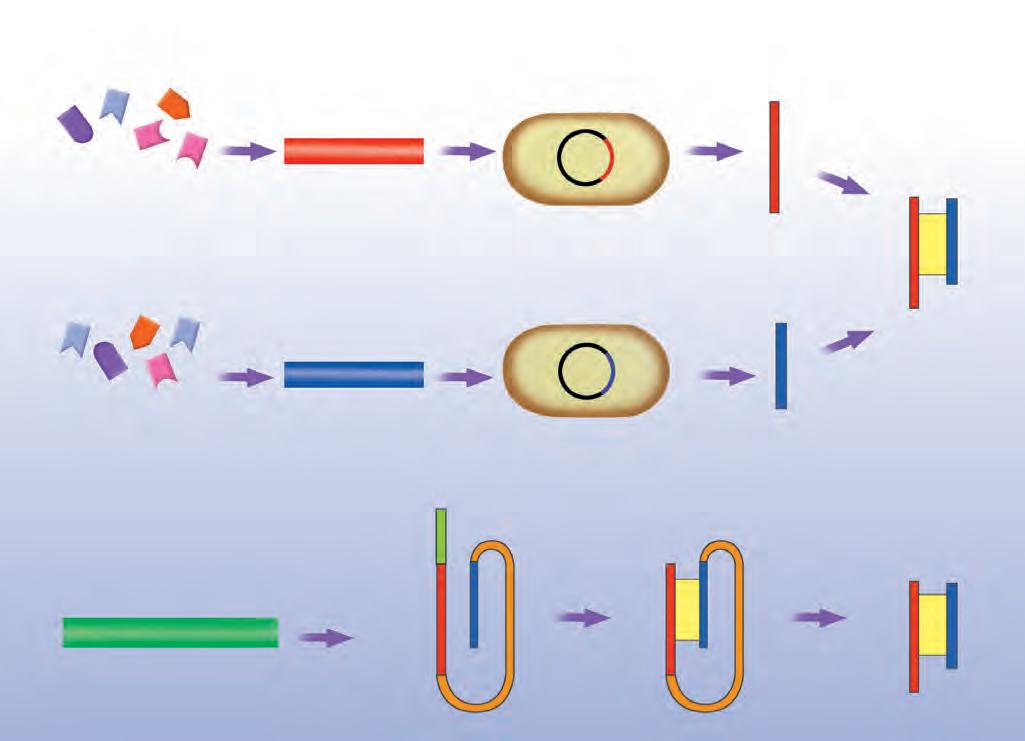
Extracte de cadena B de la proteïna
ADN per a la cadena B de la insulina
Acoblament dels nucleòtids
la seqüència humana
ADN per a la cadena A de la insulina
Producció d’insulina en una cèl·lula humana
Inserció del plasmidi en Escherichia coli
Mescla i acoblament químics
Extracte de cadena A de la proteïna
D’altra banda, les tècniques de diagnòstic han experimentat grans canvis. Per exemple, les «sondes moleculars», obtingudes per enginyeria genètica, permeten detectar de manera precoç gens defectuosos en el fetus. I els denominats anticossos monoclonals , que detecten la presència de proteïnes específiques, ja s’utilitzen en els tests d’embaràs, i s’espera que en el futur es puguin arribar a aplicar en el tractament de malalties greus.
Substrat
Membrana
b a a) Biosensor que serveix per mesurar el nivell de glucèmia.
Enzim immobilitzat
Anticòs
Cèl·lula
Producte
Membrana
b) Funcionament d’un biosensor, un dispositiu d’anàlisi que incorpora algun component biològic (un enzim, una cèl·lula, un anticòs…). Permet mesurar de manera còmoda i immediata paràmetres sanguinis, com ara la urèmia, el volum cel·lular, els clorurs, etc.
Transductor
Amplificador
Senyal
Component microelectrònic
Processador de dades
Pantalla digital
Lector
També cal recordar que d’uns anys ençà s’han començat a comercialitzar les primeres plantes transgèniques (com ara la soia), les quals incorporen gens que les fan resistents a determinats pesticides.
Actualment hi ha tests específics de laboratori, basats en les tècniques de l’ADN recombinant, que permeten detectar dotzenes i dotzenes de malalties hereditàries degudes a mutacions puntuals.
La primera malaltia hereditària que fou diagnosticada mitjançant aquestes tècniques va ser la drepanocitosi o anèmia falciforme, causada per una mutació puntual de les cadenes b -globina de l’hemoglobina. De fet, hi ha una substitució de la segona base del triplet que conté la informació per al sisè aminoàcid i en lloc d’una timina hi ha una adenina, així doncs, el sisè aminoàcid és valina en lloc de ser àcid glutàmic.
Per diagnosticar aquestes malalties es parteix de cèl·lules embrionàries obtingudes per amniocentesi o per biòpsia coriònica, i mitjançant un enzim de restricció específic ( Hpal ) es talla l’ADN i se sotmet a electroforesi (per partida doble).
L’ús de sondes radioactives o fluorescents permet detectar els fragments específics d’ADN.
A continuació, es preparen dues sondes, radioactives o fluorescents, que permetran visualitzar els fragments d’ADN específics, mutats o no. Actualment, moltes d’aquestes sondes són sintètiques.
Mentre que la sonda per al gen normal de l’hemoglobina s’hibrida amb un fragment d’uns 7000 nucleòtids, la que permet detectar la mutació s’hibrida amb un fragment d’uns 13000 nucleòtids, perquè la mutació ha afectat la seqüència que reconeix l’enzim de restricció específic. Aquestes seqüències marcadores s’anomenen polimorfismes de longitud dels fragments de restricció o RFLPs (pronunciat riflips ) i són d’una gran importància clínica.
Una mutació puntual en el gen que codifica per a la b-globina és causa de la drepanocitosi. Amb un enzim de restricció específic es talla l’ADN obtingut per amniocentesi i se sotmet a electroforesi sobre gel.
En el de l’esquerra s’hi addiciona la sonda per al gen normal i en el de la dreta la sonda per al gen mutat. La mostra 1 correspon a un individu amb dos gens normals, la mostra 2, a un heterozigot, mentre que la mostra 3 pertany a un embrió que desenvoluparà la forma greu d’anèmia.
Sonda per al gen normal
Sonda per al gen de la drepanocitosi
Una cèl·lula tumoral d’un cultiu cel·lular es divideix indefinidament, però no fabrica anticossos
Fusió d’una cèl·lula B secretora d’anticossos amb una cèl·lula tumoral
Una cèl·lula B d’un animal injectat amb l’antigen A fabrica anticossos anti A, però no es divideix indefinidament
La cèl·lula híbrida fabrica un anticòs anti A i es divideix indefinidament
Anticòs adherit a una molècula fluorescent
Antigen característic
La fluorescència indicarà la presència de l’antigen característic i, per tant, del microbi
Els anticossos monoclonals són molt específics i és probable que aviat tinguin una gran importància mèdica.
a) Es poden obtenir grans quantitats d’un sol tipus d’anticòs (anticossos monoclonals) mitjançant la fusió o hibridació d’un limfòcit o cèl·lula B (obtinguda d’un animal infectat amb un antigen X) amb una cèl·lula d’un tumor de les cèl·lules B. La cèl·lula resultant es divideix indefinidament i secreta anticossos específics anti-X.
b) Els anticossos monoclonals també podrien ser útils per al diagnòstic, ja que la presència de substàncies específiques en la sang (o en altres mostres corporals) ajuda a diagnosticar les malalties. En aquest cas s’utilitzen anticossos monoclonals capaços de reconèixer antígens específics produïts pels agents causants de malalties. Per poder-los visualitzar es fan servir anticossos adherits a molècules fluorescents. Si en la mostra analitzada hi ha antígens, aquests s’uniran als anticossos marcats amb fluorescència (primer cas).
Anticòs adherit a una molècula fluorescent * Rentatge per eliminar els anticossos lliures i exposició breu a la llum
Si no hi ha fluorescència no hi ha microbi
c) Els anticossos monoclonals es podrien usar per guiar els medicaments cap a les cèl·lules canceroses. S’uneix un anticòs monoclonal amb un tòxic cel·lular i es forma un complex que s’introdueix en el cos del pacient. Aquest complex reconeix l’antigen de les cèl·lules canceroses, i el tòxic les mata en penetrar-hi.
Anticòs Tall
El tòxic entra a la cèl·lula
Inoculació en el cos perquè l’anticòs s’uneixi a les cèl·lules canceroses
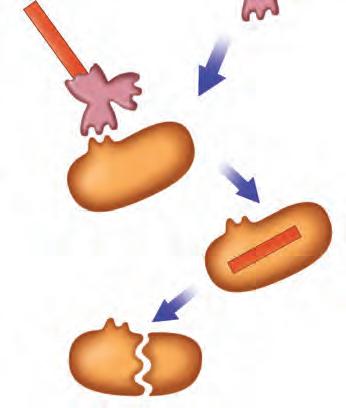
La cèl·lula mor
4.2. Desconfiança envers l’enginyeria genètica
La polèmica ha acompanyat el desenvolupament de l’enginyeria genètica des del seu començament: d’una banda, perquè persones desaprensives podrien utilitzar aquestes tecnologies amb finalitats perverses; de l’altra, pel temor que suscita com a novetat, per la seva enorme potencialitat i pels efectes desconeguts que podria tenir en la natura el fet (improbable per les mesures de precaució que es prenen) que algun organisme recombinant s’assilvestrés.
Mai fins ara l’ésser humà no havia tingut una posició tan dominant sobre la natura viva, amb tot el que això comporta de fer-ne un ús abusiu. D’una manera semblant a allò que s’esdevingué amb el descobriment de la radioactivitat i l’energia nuclear, tant el fet en ell mateix com els temors que suscita són d’una gran magnitud. No obstant això, no són els descobriments en si el que hem de témer; al contrari, obren portes insospitades uns quants anys enrere, com és el cas dels beneficis que ens proporciona l’ús dels isòtops radioactius en la pràctica clínica i en la recerca biomèdica. Però, al mateix temps, la bomba atòmica ens recorda que també es poden produir usos destructius i descontrolats.
D’altra banda, és ben curiós i paradoxal el que revelen les enquestes sociològiques: una gran majoria de la població s’expressa en contra de la manipulació gènica d’animals i plantes aplicada en els dominis de l’agricultura i la ramaderia, però, en canvi, no manifesta cap inconvenient pel que fa a l’experimentació dirigida a la teràpia gènica.
Finalment, hi ha encara altres aspectes socials i econòmics. Per exemple, s’ha plantejat la qüestió dels beneficis que obté una multinacional que comercialitza a la vegada un pesticida i una planta transgènica resistent al mateix pesticida. A més, cal un etiquetatge rigorós que informi el consumidor de les manipulacions a què s’han sotmès els productes de consum, com ara aliments, fàrmacs o substàncies d’una altra naturalesa. A la fi, hauria de ser aquest qui, ben informat, escollís; per això la informació és tan important en la societat del present i del futur.
4.3. Cap a la vida artificial?
L’any 2003, el laboratori de bioenginyeria de Craig Venter havia sintetitzat el genoma sencer del virus FX174 que té 5386 parells de bases. Era un començament. Menys de cinc anys després, el gener del 2008, el mateix C. Venter va donar a conèixer l’obtenció al seu laboratori del genoma sencer d’una cèl·lula: la del Mycoplasma genitalium (amb 582000 parells de bases i, només, 485 gens), un procariota dels més senzills.
Haver aconseguit aquella síntesi in vitro (a partir del coneixement de la seqüència) suposava un ingent treball de bricolatge genètic innovador: sintetitzar petits fragments d’ADN, engalzar-los i clonar-los utilitzant –per mitjà de solucions innovadores– les maquinàries cel·lulars d’ Escherichia coli i el llevat. I, finalment, comprovar que la seqüència completa era idèntica a la natural.
Significa això l’obtenció de vida artificial? És clar que no, però és possible veure-ho com un primer pas, tècnicament important. El següent seria demostrar que un genoma així aconseguit pot tenir activitat biològica. És a dir, inserir-lo en una cèl·lula viva i veure que funciona o, encara millor, obtenir les corresponents cèl·lules vives basades en l’expressió funcional d’aquell genoma.
De moment el vell somni de crear vida artificial al laboratori continua sent una quimera. Però, si més no, en l’àmbit dels bacteris algunes coses estan canviant. I potser les microfàbriques productores de biomolècules útils són més a prop. Ara per ara, diversos laboratoris capdavanters investiguen intensament el genoma mínim. Quin és el mínim de gens per a fer funcionar un organisme? A partir d’organismes simples com els micoplasmes i altres bacteris i a base d’anar traien i reposant gens, s’investiga què deixa de funcionar i què continua inalterat, quins gens són absolutament necessaris per al funcionament del microbi i quins no ho són.
Tècnica d’hibridació per a la detecció malaties hereditàries per mitjà de sondes d’ADN específiques
S’identifica la seqüència d’ADN que presenten els malalts
ATCGGCTACTGA ADN sa
ATCGGTTACTGA ADN malalt
Transferència de l’ADN en un paper de nitrocel·lulosa en el qual es mesura la radioactivitat. Si apareixen bandes radioactives, és perquè la sonda ha hibridat, fet que demostra que la persona presenta l’anomalia.
Mitjançant enginyeria genètica es construeix una sonda marcada radioactivament, amb la seqüència complementària de l’ADN malalt
DIAGNÒSTIC
L’enginyeria genètica es va desenvolupar a partir de l’any 1973. En canvi, la biotecnologia va començar a la Prehistòria.
La manipulació genètica d’animals i plantes i el temor a l’ús pervers per part de desaprensius i col·lectius dominants són els aspectes que susciten més desconfiança envers l’enginyeria genètica. A l’altre extrem de la balança, hi ha la recerca dirigida a la teràpia gènica. La il·lustració mostra com s’identifica, per mitjà d’una sonda d’ADN, una anomalia genètica causant d’una malaltia.

sonda radioactiva
Hibridació? No hibridació? Renaturalització de l’ADN amb la sonda radioactiva
TAGCCAATGACT
ADN complementari de l’ADN malalt
Desnaturalització de l’ADN ADN de la persona que es vol diagnosticar
Segurament, aquells no són gaire més de 200. Formarien el genoma mínim per a una vida mínima artificial. El repte biològic és formidable. Com ho són els interessos –també els econòmics– que es mouen al seu entorn.
El progrés de la recerca genètica planteja problemes ètics; alguns són nous, com ara els que estan relacionats amb les patents d’organismes genèticament modificats, però altres tenen a veure amb temes filosòfics clàssics que ara cal replantejar.
S’entén per bioètica l’estudi interdisciplinari d’aquests problemes, creats pels avenços de les ciències biològiques i mèdiques, i la seva repercussió en la societat i en el seu sistema de valors.
La bioètica pretén determinar uns principis normatius i la rectitud de les conductes d’acord amb el respecte pels drets humans i per la dignitat de la vida. Com que els problemes són nous, l’estudi encara és en construcció, a mig fer. Caldrà aclarir molts temes per tal que la humanitat es pugui beneficiar dels avenços biomèdics sense quedar perjudicada pels seus efectes negatius o perillosos.
Els temes que es plantegen són temes com ara l’eutanàsia (en quines condicions els éssers humans poden decidir sobre la pròpia mort?); el control de la reproducció (fins a quins extrems són vàlides les tècniques de reproducció assistida?, la clonació pot esdevenir una tècnica reproductiva?, de quina manera l’avenç en el coneixement genètic ha d’influir en la regulació de la interrupció de l’embaràs?); la manipulació genètica (quins límits cal establir per a les patents de materials biològics?, fins a quin punt és vàlida la manipulació animal i vegetal?, en quines condicions es poden manipular els gens humans?); els trasplantaments (què cal fer per assegurar que tothom hi pugui accedir en condicions de justícia i equitat?, com s’han de portar a terme les recerques sobre la clonació terapèutica?, quins són els límits dels xenotrasplantaments?), i sobretot el control del poder que dóna el coneixement científic (l’accés a la informació científica ha de ser lliure, públic i universal?, com s’assegura que la informació relativa a cada individu és confidencial i no s’utilitzarà per discriminar-lo?).
12.1. Defineix els conceptes següents: enginyeria genètica, tecnologia de l’ADN recombinant i biotecnologia
12.2. Digues com s’anomena l’organisme que ha rebut un o més gens forans, en el cas que es tracti... a)...d’un microbi; b)...d’una planta; c)...d’un animal.
12.3. Defineix el concepte d’enzim de restricció, digues de quina classe d’enzims es tracta i explica’n la utilitat en enginyeria genètica.
12.4. Digues en què consisteix la clonació i quines conseqüències pràctiques podria arribar a tenir.
12.5. Quines són les possibilitats de l’enginyeria genètica? Matisa la resposta segons una perspectiva temporal: esmenta exemples de coses ja realitzades, de realitzables a curt termini i, finalment, d’abastables potser a mitjà termini.
12.6. Defineix els conceptes següents: anticossos monoclonals, bioreactor, cèl·lules mare, fusió de protoplastos, genoteca, model animal d’una malaltia, teràpia gènica, xenotrasplantament, clonació terapèutica i clonació reproductiva.
12.7. Llegeix el text següent, extret d’un article publicat a El Periódico de Catalunya el 28 de novembre de 1997, i contesta a les preguntes que hi ha a continuació:
França es va convertir ahir en el primer país europeu que permet cultivar en el seu territori una varietat de blat de moro transgènica. El blat de moro acceptat […] és resistent al barrinador, una eruga que devasta els cultius, i a […] un herbicida molt potent. La decisió va ser presa per unanimitat al final d’una reunió […] sota la presidència del primer ministre. Per reforçar la informació dels consumidors, el govern ha decidit organitzar una conferència de consens sobre les plantes transgèniques juntament amb l’Oficina d’Avaluació Científica i Tecnològica. Simples ciutadans sense coneixements especials sobre la qüestió intervindran en els debats juntament amb un grup d’experts. El ministre d’Agricultura […] també va anunciar que el blat de moro tindrà un seguiment biològic i mediambiental i, si el cereal és utilitzat en la fabricació d’aliments, els consumidors en seran informats amb un etiquetatge especial.
a) Per què té tanta importància el fet esmentat?
b) Quines conseqüències pot tenir?
c) Quins altres usos pot tenir aquest blat de moro, a part dels alimentaris?
d) Valora el sentit i les conseqüències que pot tenir el fet que ciutadans que no són científics participin en el seguiment d’aquest cultiu transgènic.
12.8. Què són i quina utilitat poden tenir en els experiments de manipulació genètica els bacteriòfags de transducció restringits? I els defectius?
12.9. Explica el significat de la transducció i de la transformació, indica’n les diferències i explica per què poden ser útils en enginyeria genètica.
12.10. Contesta a les preguntes següents:
a)Què són els plasmidis?
b)Quina utilitat tenen en enginyeria genètica?
c)Per què s’utilitzen plasmidis que incorporen gens que confereixen resistència als antibiòtics?
d)De quina manera es poden substituir els plasmidis?
12.11. Relaciona cada terme o concepte del primer grup amb el corresponent del segon grup.
Primer grup :genoteca, enginyeria genètica, clonatge molecular, plasmidi, enzim de restricció, xenotrasplantament, teràpia gènica, protoplast.
Segon grup :obtenció de còpies d’una determinada molècula, endonucleasa, vehicle, tecnologia de l’ADN recombinant, arxiu de gens, cèl·lula vegetal nua, substitució d’un gen defectuós, utilització d’òrgans animals per a trasplantaments.
12.12. Explica què són els biosensors i per a què s’usen. En el futur, quina mena de biosensors es podrien desenvolupar?
12.13. Consulta la bibliografia necessària i fes un breu informe sobre la penicil·lina.
Procura que no sigui més llarg d’una pàgina i que, a més de dir, és clar, qui la va descobrir, respongui a les preguntes següents:
a)Quines circumstàncies van afavorir el descobriment de la penicil·lina?
b)Amb quines dificultats inicials es va trobar el seu descobridor?
c)Quina evolució va tenir aquest descobriment?
d)Com es va arribar a la producció industrial de penicil·lina?
e)Quin és el desenvolupament modern de les penicil·lines i dels altres antibiòtics sintètics? Quines millores biotecnològiques s’hi han introduït?
f)Com definiries el concepte d’antibiòtic sintètic?
12.14. Repassa els teus coneixements de genètica i explica què és la reacció en cadena de la polimerasa (PCR) i quines són les seves aplicacions.
12.15. Fes una relació d’alguns dels microorganismes més emprats en enginyeria genètica i mira d’esbrinar quins es van fer servir per elaborar la prova de la PCR.
12.16. Consulta l’apartat de la pàgina 384 i contesta a les preguntes següents:
a) En què consisteix el mètode de la biobalística per a l’obtenció de plantes transgèniques?
b) Quins vegetals transgènics s’han obtingut amb el mètode de la biobalística?
c) Quins avantatges presenta aquest mètode, amb relació a l’ús dels bacteris del gènere Agrobacterium ?
d) Hi ha mètodes alternatius?
12.17. Contesta a les preguntes següents, relacionades amb la clonació i l’ovella Dolly:
a)A quin fenomen natural equival la clonació a partir d’embrions?
b)En què es diferencia genèticament l’ovella Dolly d’un altre organisme clònic obtingut a partir d’un embrió?
c)Quines creus que poden ser les causes de l’envelliment prematur i l’artrosi prematura que ha experimentat l’ovella Dolly?
1. Rellegeix el document «Bioètica» de la pàgina397 i contesta a alguna de les preguntes que s’hi plantegen. Per a cada cas descrit, fes una relació d’arguments a favor i en contra d’un control més estricte o més lax del tema.
Si és possible, planteja-ho en forma de debat a la classe, de manera que estudiants diferents defensin posicions diferents.
2. Llegeix els següents extractes de notícies de premsa relacionades amb l’enginyeria genètica i publicades durant l’any 2000, i després contesta a les preguntes que hi ha a continuació.
a) 11/4/2000. Brussel·les posa en vigor l’etiquetatge obligatori per als aliments que continguin més d’un 1% d’aliments transgènics. Les associacions de consumidors han acollit favorablement la notícia.
b) 12/4/2000. Una empresa nord-americana cria uns salmons transgènics que creixen 10 vegades més de pressa perquè els ha inserit dos gens: el de l’hormona del creixement i un altre que l’activa. L’empresa assegura que són estèrils. Els detractors afirmen que això darrer és impossible de demostrar.
c) 17/4/2000. El dimarts passat les accions de Celera Corporation es cotitzaven a la Borsa de Nova York a 73 dòlars. El dimecres van pujar a 115 dòlars. Els que en van comprar el dijous –quan es va conèixer la notícia–van arribar tard: les accions s’havien apujat fins a 144 dòlars.
d) 5/5/2000. Una parella de Madrid, l’home de la qual és hemofílic i portador del virus de la sida i del virus de l’hepatitis C (que va agafar fa 18 anys en una transfusió de sang), va recórrer a la reproducció assistida amb un doble motiu: que la dona quedi embarassada sense infectar-se i que els fills no siguin hemofílics. Ahir la dona va donar a llum dues nenes perfectament sanes.
e) 7/12/2000. Científics del laboratori Roslin d’Edimburg i de l’empresa nord-americana de biotecnologia Viragen van donar a conèixer ahir l’existència de Britney, una gallina transgènica. La clara dels ous que posarà aquesta au contindrà fins a mig gram d’una proteïna anticancerígena que fins ara s’obtenia als laboratoris en quantitats mínimes (mil·ligrams).
a) Quines són les tècniques de l’ADN recombinant que suposes que s’han emprat en cada cas?
b)En relació amb la notícia del dia 17 d’abril de l’any 2000, quina és la notícia que es va conèixer el dijous d’aquella setmana?
c)En relació amb la resta de notícies, en quins fets biològics i en quines tècniques es basen els possibles efectes benèfics de l’enginyeria genètica? Quins en poden ser els riscos?
3. Més enllà de la ciència bàsica, la transcendència de l’enginyeria genètica és tan gran que afecta molts dels aspectes de la nostra vida. Per jutjar i decidir amb encert, cal tenir-ne una visió prou fonamentada i àmplia. Llegeix els textos que hi ha en aquesta pàgina i en les següents. El primer, de l’organització Greenpeace, té una oposició bel·ligerant respecte dels transgènics, mentre que els altres tres reflecteixen els punts de vista de dos professionals que es dediquen a l’enginyeria genètica. Completa la teva informació amb l’opinió d’altres grups socials.
Després discuteix, en un debat amb els teus companys i les teves companyes, les qüestions que et plantegem en la pàgina 403, al final d’aquests textos. (Si us distribuïu els papers a representar, podreu aprofundir més la discussió.)
Què són?
Un transgènic és un organisme viu que ha estat creat artificialment manipulant els seus gens. Les tècniques d’enginyeria genètica consisteixen a aïllar segments d’ADN (el material genètic) d’un ser viu (virus, bacteri, vegetal, animal i, fins i tot, humà) per introduir-los en el material hereditari d’un altre.
Quins són els seus efectes?
Medi ambient i agricultura: suposen un greu risc per a la diversitat i tenen efectes irreversibles i imprevisibles sobre els ecosistemes.
Salut: els riscos a llarg termini dels transgènics presents en la nostra alimentació no s’estan avaluant correctament i el seu abast continua sent desconegut. Sorgeixen noves dades sobre els danys a mamífers.
Societat i economia: reforcen el control de l’alimentació
per part d’unes poques empreses multinacionals. Destrueixen la seguretat i la sobirania alimentària.
Què proposem?
– Que s’apliqui el principi de precaució i se’n prohibeixi qualsevol cultiu fins que no es donin les condicions mínimes per garantir la seva innocuïtat.
– Que s’exigeixin responsabilitats a qui alliberi transgènics, per als danys al medi ambient, a la salut i a altres agricultors.
– Que el govern deixi de donar suport a aquesta indústria, en contra de l’interès global del planeta i dels ciutadans.
– Que s’ofereixi una transparència real.
– Que es respectin les normes de cultiu i d’etiquetatge.
Traduït de la pàgina web de Greenpeace (desembre de 2007)
[…] La línia argumental és comuna: els aliments transgènics són perillosos de menjar, provoquen problemes en el medi ambient i només beneficien les multinacionals que els produeixen. Què hi ha de cert, en tot plegat? Cal entendre, primerament, què són aquests aliments. Són productes biotecnològics obtinguts per mitjà de tècniques d’enginyeria genètica. Conceptualment parlant, res de nou en la tecnologia d’aliments, ja que des de l’inici de la història hom ha fet ús d’una grollera eina genètica: l’encreuament sexual i la selecció posterior. Tècnicament, és quelcom molt diferent, ja que amb l’enginyeria genètica podem modificar un únic gen del genoma d’un animal o d’una planta comestible.
Són segurs per a la salut? Si ens fixem en criteris científics, són tan segurs, o més, que qualsevol dels del supermercat. Gràcies a la tecnologia genètica, coneixem millor els canvis introduïts en una patata transgènica que en una varietat tradicional d’aquest vegetal obtinguda per millora clàssica. Però és que, a més, per poder ser comercialitzada, aquesta patata transgènica ha de superar llargues proves de laboratori encaminades a delimitar-ne la composició i a demostrar-ne la manca de toxicitat. Només aleshores podrà ser venuda. No són proves rutinàries o trivials. En el cas del tomàquet MacGregor, el primer aliment transgènic comercialitzat,
l’empresa productora va haver de fer desenes d’assajos durant més de quatre anys fins a obtenir el permís. I allò que és més important per al consumidor espanyol: així serà amb tots els aliments transgènics que es comercialitzin, d’acord amb el reglament de la UE. […] Al costat d’aquest control exhaustiu, cal recordar que qualsevol aliment tradicional obtingut per millora clàssica no necessita aquestes proves, i tanmateix ningú no aixeca la veu tot i que no sapiguem quants elements del seu patrimoni genètic hem canviat. Exigim com a consumidors el mateix nivell de control per a tots els aliments, siguin transgènics o no.
Els aliments transgènics són un risc per a la natura? Els seus detractors pensen que sí. Sobretot pel que fa als vegetals transgènics. D’una banda, argumenten que es pot produir una transferència del gen modificat de la varietat transgènica a espècies salvatges, amb la consegüent ruptura de l’equilibri ecològic. Aquest fenomen de transferència es pot produir en la natura amb una freqüència extraordinàriament baixa, però no nul·la. Per tant, cal un control sobre l’alliberament d’aquestes espècies transgèniques. Però el lector ha de saber que aquest control es porta a terme, que qualsevol alliberament de plantes transgèniques a l’ambient implica una sol·licitud prèvia avaluada i seguida per un comitè d’experts. D’altra banda, són diversos els grups ecologistes que opinen que utilitzar vegetals transgènics pot amenaçar la biodiversitat. Si repassem la història, veurem que els majors atemptats contra la biodiversitat alimentària els cometem els consumidors cada dia. Fa 300 anys, a Lleida hi havia dues dotzenes de varietats comestibles de pomes. Avui només n’hi ha dues, i això sense haver aplicat tècniques d’enginyeria genètica. Els motius són clars. El consumidor ha exigit un determinat patró organolèptic de poma i el productor ha esbiaixat els seus cultius per satisfer-lo. ¿Els aliments transgènics són un factor addicional que pot incrementar aquesta tendència? No hi ha cap motiu racional que així ho indiqui, però no hem d’abaixar la guàrdia. El problema de la biodiversitat és de tothom. […]
Hem de conscienciar els nostres conciutadans de la preservació de la biodiversitat, i afavorir, crear i mantenir col·leccions de cultiu. […]
Els opositors als transgènics argumenten que el mercat de llavors transgèniques estarà en mans d’unes quantes multinacionals, amb el consegüent risc de monopolis. ¿Saben en mans de quantes companyies està la venda de llavors no transgèniques? En mans de les mateixes que
han tingut la capacitat i l’atreviment d’invertir en R+D. Igual que en el cas dels automòbils, no més de dues dotzenes de companyies. En resum, és evident que les repercussions econòmiques dels aliments transgènics, com les de tot desenvolupament tecnològic, són importants i, en certa manera, imprevisibles […].
DANIEL RAMON VIDAL, coordinador nacional de Ciència i Tecnologia dels Aliments del CSIC El País (20 de desembre de 1997)
Segons diuen els sociòlegs, el públic europeu accepta la utilització de les noves biotecnologies quan s’apliquen al camp de la salut, però estan en contra de les seves aplicacions agrícoles o alimentàries. […]
En els mitjans de comunicació abunden els comentaris alarmistes i catastrofistes. […]
Des de l’òptica d’un científic, preocupa el corrent de pensament anticientífic amb el qual es troba a cada pas el ciutadà. Els descobriments científics hi són rebuts, tret de la premsa especialitzada, com plagues bíbliques que ens apropen a una hecatombe. […]
Pobra ovella Dolly! Més aviat sembles un boc expiatori el qual, juntament amb els científics que t’han obtingut, es pot culpar de tot allò que en aquesta societat no ens agrada, ja siguin dictadures passades o futures, reals o de ficció. Però, Dolly, pots estar tranquil·la si algun dia, potser no gaire llunyà, una companya teva aconsegueix –per obra i gràcia d’uns científics que li insereixin un parell de gens– de secretar a la llet un remei contra la plaga; [aleshores] tots aquests que ara t’infamen aniran veloços a reclamar el seu mig litre, exigint als científics la seguretat d’una curació automàtica i oblidant que abans t’havien titllat de bèstia apocalíptica. Et demanaran aleshores una resposta clara i sense matisos, que la seva incultura científica (perquè… ¿és que tal vegada la ciència és cultura?) pugui entendre […].
MIGUEL VICENTE, professor d’investigació del Departament de Biologia Cel·lular i del Desenvolupament del CSIC El País (28 de març de 1997)
La nostra relació amb el menjar en aquest principi del segle XXI és una de les millors demostracions de les paradoxes i les contraindicacions que viu la nostra societat, que considerem moderna i globalitzada. Al món hi ha enormes bosses de fam i malnutrició que disminueixen, però no acabem de resoldre aquest problema. Tanmateix, creix –fins i tot en països en desenvolupament– el nombre de persones per a les quals l’obesitat és un problema. [...] Al mateix temps, la imatge de l’aliment criat amb els cànons d’una agricultura tradicional idealitzada és el que ens guia sovint a decidir què mengem. [...] Sabem que la nostra agricultura és agressiva amb el medi ambient i no volem que es guanyin terrenys de cultiu a partir de terrenys encara no explotats. I, per si no n’hi hagués prou, ens assabentem amb sorpresa de l’aparició de tecnologies com la clonació d’animals o les plantes modificades genèticament. Quan cal prendre decisions sobre aquest tema, les nostres contradiccions afloren amb tota la seva esplendor.
Fixem-nos en la clonació d’animals de granja. Quan fa poc més de 10 anys va néixer Dolly s’obrí una nova pàgina en la història de la biologia. [...] Unes 500 vaques i porcs clonats creixen actualment als EUA i s’espera l’arribada a Europa en qualsevol moment de semen de toros clonats o de carn procedent dels seus descendents. [...] No hi ha cap raó per pensar que els productes procedents d’animals clonats plantegin problemes per a la salut. Tanmateix, a Europa ens preguntem quins avantatges reals plantegen aquests animals mentre que la seva creació implica problemes de benestar animal i el seu ús sistemàtic pot reduir la diversitat d’espècies en les quals es basa la nostra alimentació. [...]
Més complicat per als responsables polítics és el problema de les plantes modificades genèticament. Perquè aquestes sí que han demostrat avantatges en el seu ús, però també han concitat unes reaccions violentes i organitzades en contra. Es tracta de plantes a les quals, per mitjà de mètodes moleculars, s’ha introduït un gen que no existia en l’espècie. Quan el 1983 es demostrà que seria possible fer aquest tipus de modificacions, ja es va veure que la tecnologia obria moltes possibilitats d’aplicació, però que podria arribar a produir riscos que s’haurien de minimitzar. Per això, des de 1986 als EUA, i des de 1990 a Europa, s’han dictat unes nor-
matives molt rigoroses que permeten l’ús d’aquesta nova tecnologia amb la cautela més gran. Al món es plantaren, el 2007, 100 milions d’hectàrees d’aquestes plantes: soja, blat de moro, cotó i colza, essencialment. Les modificacions introduïdes en aquestes plantes afavoreixen un cultiu més fàcil i les protegeixen dels atacs dels insectes. La realitat és que l’agricultura d’alguns països ha canviat de manera radical. A l’Argentina, per exemple, la superfície de soja s’ha multiplicat i la seva exportació és essencial per a l’economia argentina. Aquesta soja s’usa, essencialment, per a dues coses: per produir oli que es fa servir sobretot als països de l’est d’Àsia i per a pinso que s’usa a Europa en gran quantitat. [...] A Europa, amb la prohibició de les farines càrniques després de la crisi de les vaques boges, la soja importada d’Amèrica, la majoria transgènica, és imprescindible per als pinsos, i quelcom de semblant s’esdevé amb el blat de moro. [...]. Tanmateix, l’oposició a aquestes plantes continua sent intensa.
Però davant del menjar és difícil de reaccionar fredament. [...] Per a la part opulenta del nostre món, la funció del menjar no és ben bé la d’aliment. El menjar és una forma d’art, és part del nostre estil de vida, una forma de comunicar-nos i d’expressar les nostres conviccions. I semblem oblidar que avui el menjar és un producte industrial, un element de comerç global, quelcom que s’ha de produir de manera eficient, que està afectat pels equilibris globals. [...]
L’aplicació de noves tecnologies a la recerca d’aliments existeix des d’abans que existís la història. [...] I no es va fer sense conflictes, tal com ho demostra la lluita entre l’agricultor i el caçador que apareix en tota la literatura començant per la història de Caín i Abel. [...] Per fer front als reptes que tenim davant, no podem permetre’ns la possibilitat de deixar d’utilitzar qualsevol tecnologia que ajudi a assegurar la producció d’aliment abundant i saludable. Juntament amb aquestes, hem desenvolupat mecanismes socials i científics que ens permeten fer-les servir amb tota prudència. Utilitzar sàviament tecnologies i mecanismes de reflexió i control és imprescindible per afrontar la complexa problemàtica que s’acosta.
PERE PUIGDOMÈNECH, membre del Grup Europeu d’Ètica de les Ciències i les Noves Tecnologies El País (15 de març de 2008)
a)Què vol dir R+D? Per què és important? A què es refereix Daniel Ramon Vidal per explicar la desaparició de les varietats de pomes? Com ho explicaries? Quines són –segons aquest mateix text– les mesures de control que es prenen abans de la comercialització d’un vegetal transgènic? ¿Són adequades aquestes mesures?
b)Algunes de les idees expressades pels autors dels textos no són l’expressió de fets científics, sinó d’opinions. Com a opinions –per bé que fonamentades–, són objecte d’una crítica raonada?
c)Quins són els riscos de les plantes transgèniques per a la salut de les persones? ¿I per al medi ambient?
d)Com a consumidors, què podem exigir respecte de la difusió dels productes biotecnològics?
e)De quina manera els científics poden garantir la seguretat dels desenvolupaments de l’enginyeria genètica?
f)Explica la manera de superar les actituds anticientífiques. Argumenta quina seria la conducta més assenyada que caldria prendre davant de les noves tecnologies.
g) Explica quina és l’actitud dels científics davant dels riscos que, segons els seus detractors, presenten els aliments transgènics.
A Adenina
ADN o DNA Àcid desoxiribonucleic
ADNasa Desoxiribonucleasa
ADNc ADNcomplementari
ADNmt ADNmitocondrial
AMP, ADP, ATP Monofosfat, difosfat i trifosfat d’adenosina
AMPc AMPcíclic
ARN Àcid ribonucleic
ARNasa Ribonucleasa
ARNm Àcid ribonucleic missatger
ARNr Àcid ribonucleic ribosòmic
ARNt Àcid ribonucleicde transferència
C Citosina
CMP, CDP, CTP Monofosfat, difosfat i trifosfat de citidina
CoA Coenzim A
FAD Dinucleòtid de flavina i adenina
FADH2 Forma reduïda del FAD
fMet N-formil-metionina
G Guanina
GMP, GDP, GTP Monofosfat, difosfat i trifosfat de guanosina
NAD+ Dinucleòtid d’adenina i nicotinamida
NADH Forma reduïda del NAD
NADP+ Fosfat del dinucleòtid d’adenina i nicotinamida
NADPH Forma reduïda del NADP
P i Fosfat (ortofosfat) inorgànic
PEP Fosfoenol pirúvic
PP i Pirofosfat inorgànic
T Timina
TMP, TDP, TTT Monofosfat, difosfat i trifosfat de timidina
U Uracil
UMP, UDP, UTP Monofosfat, difosfat i trifosfat d’uridina
1a posició 2a posició 3a posició (extrem 5’) UCAG (extrem 3’)
U
Phe Ser Tyr Cys U
Phe Ser Tyr Cys C
LeuSer STOPSTOP A
LeuSer STOP Trp G
Leu Pro His Arg U
Leu Pro His Arg C C
A
Leu Pro Gln Arg A
Leu Pro Gln Arg G
Ile Thr Asn Ser U
Ile Thr Asn Ser C
Ile Thr Lys Arg A
Met Thr Lys Arg G
Val Ala Asp Gly U
Val Ala Asp Gly C G
Val Ala GluGly A
Val Ala GluGly G
TEMPS FANEROZOICS
MESOZOIC I CENOZOIC) PRECAMBRIÀ
Condicions oxibiòtiques.
Primers metazous. (S’ha trobat fauna fòssil a Ediacara, sud d’Austràlia.)
Reproducció sexual.
Cèl·lules eucariotes.
Algues cianofícies.
Protoalgues. Primers indicis d’activitat fotosintètica.
Primers indicis d’activitat orgànica: estromatòlits.
(PRIMARI)
Atmosfera anòxica, sense oxigen. Roques sedimentàries més antigues conegudes. HOLOCÈ
Aparició del gènere Homo.
PLIOCÈ MIOCÈ
OLIGOCÈ
EOCÈ
PALEOCÈ
Gran desenvolupament dels mamífers.
Important extinció en massa.
Gran expansió biològica.
Primeres aus.
Aparició de les angiospermes.
Gran expansió biològica.
Aparició dels mamífers.
La més gran extinció coneguda.
Gran desenvolupament de la vegetació.
Primers rèptils.
Extinció en massa.
Primers amfibis.
Colonització del medi continental.
Primeres plantes terrestres.
Extinció en massa.
Primers vertebrats: agnats (ostracoderms i ciclòstoms).
Explosió vital (Big Bang biològic) amb gran diversificació de la biosfera.
Primers animals amb closca protectora.
Primers cordats.
ANIMALS
Eucariotes pluricel·lulars heteròtrofs
Símbols i abreviatures Codons dels aminoàcids
A AlaAlaninaGCAGCCGCGGCU
C CysCisteïnaUGCUGU
D Asp Àcid aspàrticGACGAU
E GluÀcid glutàmicGAAGAG
F PheFenilalanina UUCUUU
G Gly GlicinaGGAGGCGGGGGU
H HisHistidinaCACCAU
PLANTES
Eucariotes pluricel·lulars autòtrofs
FONGS
Eucariotes unicel·lulars o pluricel·lulars heteròtrofs
CRIPTÒGAMES I FANERÒGAMES (sense flors) (amb flors)
PROTOCTISTOS
Eucariotes unicel·lulars o multicel·lulars, autòtrofs o heteròtrofs
LLEVATS, FLORIDURES I BOLETS
I Ile Isoleucina AUAAUCAUU
K LysLisina AAAAAG
L LeuLeucina UUAUUGCUACUCCUGCUU
M MetMetionina AUG
N AsnAsparagina AACAAU
P ProProlina CCACCCCCGCCU
Q Gln Glutamina CAACAG
R ArgArginina AGAAGGCGACGCCGGCGU
S Ser Serina AGCAGUUCAUCCUCGUCU
T Thr Treonina ACAACCACGACU
V ValValina GUAGUCGUGGUU
W TrpTriptòfan UGG
Y Tyr Tirosina UACUAU
MONERES
Procariotes unicel·lulars
PROTOZOUS I ALGUES
BACTERISICIANOFÍCIES
AAbbe, Ernest 9 àcar 117
acetilcolina 102, 106, 108, 109 àcid 41, 43, 44, 45, 64, 68, 99, 102, 122, 185, 187, 188, 190, 191, 193, 194, 195, 197, 198, 200, 201, 218, 222, 223, 226, 228, 229, 233, 234, 237, 238, 239, 240, 241, 242, 243, 244, 250, 252, 253, 255, 256, 257, 259, 260, 261, 304, 307, 313, 323, 325, 328 acilglicèrid 195, 198 acrilamida 206 actina 106, 212 adenina 239, 244, 246, 256, 258, 259, 260, 241, 392 adenohipòfisi 95, 96 adenoide 111 adenoma 368
ADN 24, 32, 47, 48, 49, 55, 64, 65, 69, 76, 77, 84, 86, 93, 131, 147, 153, 154, 173, 203, 204, 210, 211, 215, 218, 224, 237, 238, 239, 240, 243, 244, 245, 246, 247, 248, 250, 251, 254, 255, 256, 257, 258, 259, 260, 261, 282. 303, 304, 305, 306, 308, 309, 310, 311, 312, 313, 314, 315, 316, 318, 323, 324, 325, 326, 328, 334, 335, 336, 338, 342, 343, 345, 349, 352, 355, 356, 368, 373, 374, 375, 377, 379, 380, 384, 385, 393, 396, 400, 401 adrenalina 92, 93, 94, 98, 99, 100, 102, 126, 128, 303 adrenocorticotròpica 96 agrobiologia 382
albúmina 156, 211, 218, 226, 227, 228, 234 alcà 187
àlcali 193, 197, 201 alcaptonúria 309 aldosterona 98 alga 56, 137, 148, 149, 152 al-Haytan, Ibn 8 al·lel 268, 270, 274, 275, 277, 280, 281, 282, 289, 290, 294, 340, 355, 365, 366, 369 al·lelomorf 268 al·lergogen 117 al·lògama 140 Alzheimer 103 ameba 38, 168 amfetamina 107, 108 amfibi 143, 169, 174, 250 amfipàtic 210 amfòter 205, 210 amígdala 111 amiloplast 46, 55, 61
amino 209, 210, 215 aminoàcid 37, 41, 43, 44, 48, 93, 102, 188, 191, 203, 204, 205, 206, 207, 208, 210, 212, 213, 214, 216, 219, 222, 223, 225, 227, 230, 253, 254, 258, 309, 317, 318, 319, 310, 322, 326, 327, 334, 339, 342, 371, 377, 392 amniocentesi 363 amniota 169 anabolisme 96 anafase 63, 70, 72, 74 anafilaxi 127 androceu 141, 146, 179 androgen 93, 97, 98, 126 anèl·lid 158 anemògama 146 aneuploïdia 330, 331 angiosperma 141, 146, 163 angiotensina 102 anió 193, 194 anisogàmia 137, 146 antibiòtic 343, 379, 380, 399 antera 141, 147, 151 anteridi 137, 151 anterozoide 137, 139, 140, 145, 151, 174 anticodó 318, 326 anticòs 110, 111, 112, 113, 114, 115, 116, 119, 120, 121, 122, 212, 218, 221, 337, 392, 394, 398 antigen 110, 112, 113, 114, 115, 116, 117, 119, 126, 212, 354, 355, 394 antiretroviral 121 aparell digestiu 122 aparell genital 144 apoenzim 220 apoptosi 90, 119 apterigot 160
Arber, Werner 375, 378 arginina 247
ARN 44, 46, 48, 64, 122, 123, 204, 224, 237, 238, 239, 240, 244, 249, 250, 252, 255, 256, 257, 259, 261, 309, 310, 312, 313, 314, 315, 319, 321, 322, 323, 324, 326, 332, 340, 341, 342 arquegoni 137, 151 arquènteron 157, 160, 171, 172 arqueobacteri 18, 31, 40, 54 arteriosclerosi 224 artropode 158 ascomicet 58 asexual 145, 147, 148, 149, 150, 152
Asimov, Isaac 289 aspartam 222 aspartat 102 àster 46
àtom 184, 187, 189, 193, 195, 197, 208, 260, 323
autofàgia 44, 55
autofecundació 138, 145, 265, 267, 268 autògama 140 autopol·linització 140 autosoma 66, 68, 281, 367 autotomia 135, 136 autòtrof 20, 24M Avery, Oswald Theodore 304, 305, 307, 308, 340, 374 axioma 70 axó 90, 101, 104, 106, 109
B
bacteri 16, 18, 20, 31, 38, 54, 56, 81, 82, 114, 115, 133, 185, 204, 212, 247, 248, 250, 252, 281, 304, 305, 306, 315, 319, 327, 334, 338, 349, 377, 378, 379, 382, 384, 399, 401 bacteriòfag 306, 307, 399 Baltimore, David 323, 324 basòfil 119
Beadle, George Wells 309 Beneden, Eduard van 278 Benítez Ortiz, Javier 346 Benzer, Seymour 281 Bernard, Claude 32, 90 binomi 274 biobalística 384, 385, 399 biocenosi 183 bioelement 181, 184, 186, 197, 198 biomolècula 40, 42, 43, 46, 49, 54, 55, 181, 183, 184, 185, 187, 190, 191, 194, 196, 203, 204, 210, 224, 396 biologia 183, 238, 254, 260 bioquímica 198
biosfera 47, 183, 185, 186, 197, 198 biosíntesi 96 biotecnologia 373, 374, 375, 381 biòtop 183 bipartició 135 bisexual 138, 145 biuret 226 bivalent 73, 74 blastocel 155, 156, 157, 172 blastodisc 156 blastòmer 155, 156, 170, 171 blastòpor 157, 158, 160, 170, 171, 172
blàstula 155, 156, 170, 171, 172 Botticelli, Sandro 264 Boveri, Theodor 10, 16, 277, 278 Boyer, Herbert 375, 378 bradicinina 102
Bridges, Calvin 281 briòfit 151 briozou 133 bromatologia 230 Brown, Robert 9, 16 Buchner, Eduard 374
C calaza 234 calci 64, 97, 98, 162, 190, 191, 200 calcitonina 97, 102, 128 calze 141 càncer 63, 78, 79, 80, 81, 82, 83, 121, 122, 336, 368 càpsida 122 carboxil 205, 215 carboxioma 19 cariolimfa 84, 86 cariotip 65, 67, 68, 84, 86, 347, 348, 356, 362 carotenoide 46, 50 carpel 138, 141 cartílag 162 caseïna 218, 221 catabolisme 92 catalasa 45, 50, 55, 211 catalitzador 203, 211 catèter 145 catió 194 cefalina 35 celenterat 158 cel·lulasa 221 cel·lulosa 38, 55 celoma 172 celumat 158 centrifugació 12 centríol 46, 48, 72, 86 centròmer 65, 67, 71, 72, 248, 348 centrosfera 46, 48 centrosoma 33, 46, 48 ceratina 211 Chan, Shing 375, 377 Chain, Ernst 374 Chargaff, Erwin 238, 244 Chase, Martha 306, 307, 308, 309 cianofícia 20 cicle cel·lular 69, 76, 86 ciclina 69, 70 ciclosi 41 ciclosporina 112 cili 18, 42, 46, 48, 212 ciliat 59, 157 cirrosi 82 cisteïna 213, 224 cisterna 107 citidina 240, 242 citocrom 218 citoesquelet 32, 39, 40, 41, 42, 46, 47, 55, 211, 333 citogenètica 347 citologia 13, 18, 83, 183, 198 citoplasma 19, 31, 32, 35, 36, 37, 38, 40, 41, 42, 44, 45, 47, 52, 55, 64, 67, 72, 77, 81, 86, 101, 106, 109, 123, 137, 145, 165, 241, 248, 253, 315, 317, 322 citoquina 119 citosina 239, 244, 256, 258, 259, 260, 341
citosol 40, 41, 55, 67, 93, 104 citostoma 17, 32, 39, 71
clamidomona 59 clon 135, 380 clorofil·la 46, 50 cloroplast 18, 20, 32, 33, 45, 46, 47, 48, 49, 54, 55, 165, 247, 250 clorosoma 19 clorur 190 closca 156, 164 cnidari 158 cocaïna 107 codó 318, 320, 322, 326, 339, 340, 342 codominància 267, 271 coenzim 220 cofactor 220 Cohen, Stanley 375, 378 coleòpter 161 colesterol 35, 50 colinealitat 315, 326 col·lagen 214, 217 col·lènquima 165 Collins, Francis 349 col·loide 192, 196 complex de Golgi 34, 43, 47, 52, 55, 71
comunicació cel·lular 89, 90, 91, 92 comunicació endocrina 91 comunicació paracrina 91 condròcit 55, 162 conducte toràcic 111 conjugació 20 cordat 158 coreceptor 123 corol·la 141, 146 còrtex 98 corticosterona 98 corticotropina 102 cortisol 92, 98, 128 cortisona 98, 126 cos cel·lular 101 cotilèdon 163, 164, 178, 265 cresta 44, 45, 55 Crick, Francis 238, 244, 252, 253, 260, 309, 374 crisàlide 170, 172, 299 cromàtida 65, 71, 72, 76, 77, 86 cromatina 40, 49, 51, 55, 64, 65, 67, 72, 77, 84, 86, 218, 248, 257, 335, 336 cromatografia 206, 228, 229 cromoplast 45, 46 cromoproteïna 218 cromosoma 19, 32, 63, 64, 65, 66, 67, 68, 69, 71, 72, 73, 74, 75, 76, 77, 84, 86, 87, 117, 135, 147, 148, 153, 173, 244, 247, 248, 249, 251, 257, 259, 271, 272, 274, 277, 278, 280, 281, 282, 285, 286, 291, 294, 299, 300, 304, 312, 317, 323, 324, 326, 329, 330, 338, 345, 346, 347, 348, 350, 351, 355, 356, 360, 361, 363, 364, 366, 367, 368, 369, 379, 387 cúrcuma 234
DDarwin, Charles 289 dendrita 101, 109 dentina 158 dermis 158 deshidratació 14 desnaturalització 204 desoxiribonucleasa 244 desoxiribosa 188, 239, 243, 244, 252 despolarització 104, 105 deuterostomat 158, 170, 172 diabetis 100, 128 diacinesi 74 diàlisi 192 diatomea 190 dicari 153 dicotiledònia 163 dictiosoma 43, 55 Diderot, Denis 132 dihibridisme 264, 268, 269, 281, 300, 301 dihidrouridina 253 dihidroxiuridina 318 dímer 116 dinorfina 102 dinucleòtid 241 dioica 138 dipèptid 208, 210 diploblàstic 158, 172 diplohaploide 286 diplohaplont 148, 149 diploide 174, 281, 286, 294, 331 diplont 148, 149 diplotè 74 dípter 161 displàsia 79, 83 divisió cel·lular 77, 79, 87 dominant 265, 268, 289, 290, 292, 294, 360, 366, 367 dopamina 102, 107, 109 dormició 163, 165 drosòfila 279, 284, 285, 287, 288, 292, 296, 297, 299 Duve, Christian de 33, 342, 344, 377
Eecosistema 183 ectoderma 158, 160, 171, 172 elastinina 217 electró 10, 46, 194, 195 electroforesi 205, 206, 348, 355 elongació160 embolcall nuclear 64, 68, 71, 72, 73, 77, 86 embrió 155, 156, 157, 158, 163, 164, 172, 386, 387, 393 embriologia 154, 183 emulsió 196, 197 encèfal 95, 162 encefalina 102 encefalopatia 125 endocitosi 37, 38 endocrinologia 100 endoderm 158, 165, 171, 172
endometri 145 endonucleasa 244, 378 endoplasma 38 endorfina 102, 108 endosimbiosi 18, 40, 44 endosoma 52 endosperma 163 endosquelet 190 entrecreuament 77
enzim 37, 38, 43, 45, 46, 47, 48, 51, 55, 64, 97, 106, 122, 164, 195, 203, 211, 218, 220, 221, 223, 244, 250, 255, 258, 309, 312, 314, 320, 322, 323, 324, 333, 334, 339, 343, 349, 374, 378, 380, 384, 392, 393, 398, 399
eosinòfil 119 epidèmia 121, 125 epidermis 56, 158, 165 epífisi 97, 98, 126 epigenètica 303, 335 epigenoma 335, 351 epinefrina 98, 126 epístasi 287 epiteli 162 epítop 115, 119 equinoderm 158, 190 eritropoetina 98 escissió 58 esclerènquima 165 escleroproteïna 221 esclerosi 127 esfenoide 95 esperma 124, 144, 145 espermàtide 75 espermatòcit 75 espermatòfit 141 espermatogènesi 73, 75, 96 espermatogoni 75 espermatozoide 9, 15, 52, 73, 75, 77, 86, 137, 139, 142, 145, 146, 148, 156, 168, 174, 176, 278, 285, 297, 371 esponja 133, 158, 170 espora 11, 17, 117, 133, 136, 145, 149, 151, 153, 174 esporangi 133, 136, 151 esporòfit 149, 150, 151, 152, 153 esporulació 133, 135, 136 esquama 141 esqueix 134 estam 138, 140, 141, 179 estentor 59 èster 195 esterificació 195, 196 esteroide 92, 126 estigma 140, 177, 179, 265 estil 265 estiloníquia 58 estímul 105, 109, 163 estirp 265, 390 estoló 134 estradiol 92, 97 estreptomicina 342
estroma 45, 46, 54 estrogen 93, 97, 100, 126 estructura cel·lular 31, 131 estructura molecular 115, 116, 215 etologia 166 eucariota 18, 19, 20, 24, 31, 32, 33, 39, 40, 41, 44, 45, 46, 47, 48, 49, 50, 51, 54, 55, 56, 64, 135, 183, 244, 247, 248, 249, 251, 252, 253, 310, 314, 315, 316, 317, 318, 319, 322, 324, 334, 338, 341, 342, 376 eucromatina 248 euglena 59 euploïdia 330, 331 euplota 59 eutrofització 382 exnucleasa 244 exó 315, 316, 317, 338 exocitosi 37, 38, 52 exoderma 165 exoribonucleasa 255 exosquelet 190 extracció 118
Ffagòcit 113 fagocitosi 37, 38, 44, 52, 114, 126 fanerògama 141, 146 fecundació 84, 133, 136, 138, 139, 142, 143, 144, 145, 146, 147, 149, 153, 163, 166, 172, 173, 176, 278, 297 fenàs 179 fenilalanina 213, 214, 222, 318, 339 fenolftaleïna 199, 201 fenotip 263, 269, 270, 274, 282, 284, 287, 289, 290, 293, 299, 300, 323, 356, 372 fermentació 41, 58, 374, 381 Fernández Nonídez, José 291 feromona 167, 168 fibra 86 fibrinogen 212, 218, 221 fibrosi 365 flagel 18, 42, 46, 48, 49, 55, 59, 137, 212 flagel·lat 59 flavili 201
Fleming, Alexander 374, 381 Flemming, Walther 10, 278 floema 165 Florey, Howard 374 fluorescència 76 fol·licle ovàric 96, 144 fong 33, 55, 58, 133, 148, 149, 153, 306 foraminífer 190 formaldehid 225, 232 fosfoglicèrid 35 fosfolípid 35, 36, 40, 64, 190 fosfoproteïna 218 fòsfor 97, 98, 185, 196, 204, 260 fosforilació 195 fosforilasa 323
fossa sinàptica 102 fotoperíode 164 fotosíntesi 20, 32, 33, 45, 47, 49, 55, 59, 165, 185, 186 fragmoplast 71
Franklin, Rosalind 238
Frisch, Carl von 166 fructosa 188
G
galactosa 188 Galileu 23 gàmeta 11, 20, 77, 86, 133, 135, 136, 137, 141, 142, 145, 146, 147, 148, 149, 166, 176, 250, 266, 269, 273, 276, 285, 291, 361, 362 gametangi 137, 145, 146 gametòfit 149, 150, 151, 152 gametogènesi 77, 86, 136, 148 gammaglobulina 116 gangli 162
Garrod, Archibald Edward 309 gastrina 97 gàstrula 158, 170, 171, 172 gastrulació 157, 158 Gellert 374 gemma 133, 134, 136, 174 gemmació 58, 133, 135 gen 78, 79, 81, 83, 91, 126, 135, 212, 219, 247, 248, 268, 269, 274, 275, 277, 282, 283, 284, 286, 287, 288, 290, 291, 292, 301, 303, 309, 314, 315, 316, 317, 323, 324, 325, 326, 332, 333, 334, 335, 337, 341, 345, 347, 350, 351, 353, 358, 365, 368, 371, 373, 377, 378, 380, 382, 383, 384, 388, 390, 393, 399 genètica 183, 198, 263, 264, 268, 273, 274, 277, 281, 282, 284, 285, 286, 287, 294, 296, 298, 309, 339, 368, 390 genoma 79, 116, 122, 123, 212, 254, 303, 316, 324, 325, 332, 334, 335, 338, 345, 347, 349, 350, 356, 368, 375, 389, 396 genòmica 212 genotip 263, 269, 270, 275, 282, 284, 287, 289, 290, 291, 353, 356, 372 germen 131, 132, 133, 136, 146, 147, 174, 175 germinació 164, 172, 176 gimnosperma 141, 146 gineceu 141, 146, 179 glàndula 88, 91, 93, 94, 95, 96, 97, 98, 100, 101, 126, 128, 145, 146, 158, 387 gliadina 211, 218 glicèrid 218 glicerina 188, 191, 198 glicina 102, 205, 223, 224 glicocàlix 35, 39 glicocola 225, 226, 227 glicogen 55, 99 glicogenòlisi 99
glicolípid 35, 39 glicòlisi 41, 55 glicoproteïna 32, 35, 39, 43, 44 glòbul blanc 110, 113, 119, 348 glòbul vermell 16, 191, 353 globulina 218
glucagó 92, 93, 99, 100, 102, 126, 128 glucèmia 99, 100, 129, 392 glúcid 44, 64, 98, 99, 100, 187, 188, 191, 203, 212, 218, 241 glucocorticoide 98 glucòlisi 99, 333 gluconeogènesi 99 glucoproteïna 218 glucosa 41, 99, 100, 102, 129, 188, 191, 195, 198, 211, 230, 343 glucosúria 100 glumel·la 179 glutamat 102 glutenina 218
Goffeau, André 246, 338
Golgi, Camillo 103 goll 126 goma 39
gònada 137, 145, 158, 175, 176 gonadotropina 96, 97
Goni 59
gorgònia 133 grànul 55 granulòcit 113, 119, 120 grànum 46, 48
Grew, Nehemiah 22
Griffith, Frederick 304, 305, 340, 379 guanina 239, 240, 256, 259, 260, 261, 315, 326, 340
HHansen, Bruno 338 haploide 174, 282, 286 haplont 148, 149, 153 helicobacteri 82 hemicel·lulosa 39 hemimetàbola 161, 170, 172 hemizigot 280, 282 hemocianina 218 hemocromatosi 368 hemofília 366 hemoglobina 191, 195, 211, 218, 219, 221, 223, 392, 393 hepatitis 82 herència 263, 264, 266, 267, 275, 277, 279, 280, 282, 284, 286, 287, 295, 360, 367, 370 hermafrodita 138, 140, 145, 146 hermafroditisme 135, 146 heroïna 108
Hershey, Alfred Day 306, 307, 308, 309
Hertwig, Oscar 10, 278 heterocromatina 248, 335 heterocromosoma 66, 68, 86, 282, 348, 367
heterofàgia 44 heterogamètic 68
heteroproteïna 204, 218 heteròtrof 20
heterozigot 267, 268, 274, 275, 280, 282, 365, 372
híbrid 266, 267, 268, 269, 282, 293, 311, 382 hibridoma 375 hidrocarbur 186, 187, 191 hidròfil 192 hidròfob 192 hidrolasa 44, 50, 211 hidròlisi 99, 195, 196, 197, 220, 221 hidrolític 44 hidroxil 193, 208 hifa 153 hílum 164
himenòpter 161 hiperglucèmia 99, 100 hipermetilació 368 hiperplàsia 79, 83 hipersensibilitat 94, 117, 119, 126, 127 hipertensor 96 hipertiroïdisme 94
hipòfisi 89, 94, 95, 96, 97, 98, 99, 100, 102, 126
hipoglucèmia 99 hipoglucemiant 126 hipotàlem 89, 94, 95, 97, 98, 100, 102 hipotiroïdisme 94 histamina 102 histidina 213, 214 histocompatibilitat 119, 355, 357 histologia 183 histona 19, 64, 218, 248, 249, 251, 335, 336 histopatologia 78 holoenzim 220 holometàbola 161 holoproteïna 204 homogamètic 68, 86 homozigot 275, 280, 282, 299, 372 Hooke, Robert 8, 9, 22, 23, 24 hormona 89, 92, 93, 94, 95, 96, 97, 99, 100, 101, 126, 128, 218, 322, 375, 391, 400 humoral 126
Iimago 161, 171, 172, 296 immunocompetència 111 immunoglobulina 115, 119, 120, 212, 218, 221, 337 immunologia 110 immunosupressor 120 implantació 118 impregnació 166 impuls 90, 92, 102, 104, 105, 109, 185 inducció embrionària 160 infecció 121, 122, 123, 124 inseminació 144, 145 insulina 93, 99, 100, 102, 112, 126, 128, 129, 211, 221, 390 insulinodependent 100
integració 123 interfase 69, 70, 76 interferó 119, 391 interleucina 119 intró 315, 316, 317, 326 invaginació 47 ió 36, 37, 46, 64, 92, 98, 104, 184, 193, 194, 205 isogàmia 137 isoleucina 213, 214, 342 isòmer 191, 195, 198 isòmera 187 isomeria 191 isomerització 195, 196 isotèrmic 11 isòtop 307, 308, 310, 326, 356
JJacob, François 182, 304 Johannsen, Wilhelm 268, 323
K
Kepler, Johannes 23 Kölliker, Rudolf Albert von 9 Kornberg, Arthur 323, 374 Kossel, Walter 238
L
lactasa 221 lactífer 165 lactoalbúmina 218 lactogen 97 larva 56, 87, 157, 161, 172, 177, 295, 296, 297 latència 164 Lederberg, Joshua 309 Leeuwenhoek, Anton van 9, 16, 22, 374 lepidòpter 161 leptotè 74 leticina 35 leucina 213, 214, 224 leucòcit 38, 113, 114, 116, 117, 119, 126, 348 leucoplast 45, 46, 55 Levan, Albert 347 líber 165 limfocina 114, 119 limfòcit 110, 113, 114, 115, 116, 119, 120, 122, 125, 126, 127, 212, 337 limfoide 120 lipasa 211, 221, 221 lípid 40, 42, 44, 46, 51, 64, 98, 99, 187, 195, 198, 203, 212, 218, 241 lipoproteïna 99, 211, 218 lisina 214, 248, 326 lisosoma 34, 38, 43, 44, 47, 49, 52, 55, 244 llevat 58, 133 llindar d’excitació 105 Lorenz, Konrad 166, 172 Lucreci 264 lugol 225, 231
M
MacLeod, Colin Munro 305 macròfag 38, 89, 113, 115, 119, 120, 122, 126
macrogàmeta 137, 145, 146 macromolècula 50, 187, 188, 191, 197, 198, 224 macromutació 327 Malpighi, Marcello 9, 22 Martínez, Crisòstom 22 mastòcit 119
matriu 39, 44, 45 McCarty, MacLyn 305 medul·la 98, 99, 103, 105, 109, 111, 112, 113, 116, 118, 162, 249, 356 megàspora 73, 151 meiosi 63, 68, 73, 74, 75, 76, 77, 84, 86, 135, 136, 137, 147, 148, 149, 151, 153, 271, 272, 273, 282, 294 melanoma 82 melatonina 98, 126 melsa 111
membrana cel·lular 31, 32, 35, 86, 93, 104, 123, 385 membrana nuclear 72 membrana plasmàtica 33, 35, 36, 38, 39, 40, 41, 43, 46, 47, 61, 71, 72, 109
membrana postsinàptica 102, 108 membrana presinàptica 102 membrana unitària 35 Mendel, Gregor Johan 263, 264, 265, 266, 267, 268, 270, 275, 277, 282, 284, 289, 290, 293, 294, 295, 323, 374 menopausa 368 meristema 158, 163, 165, 170, 172 Meselson, Matthew 310, 311, 325 mesènquima 158 mesoderma 158, 160, 171 mesoglea 158 metabisulfit 232 metabolisme 92, 94, 97, 98, 99, 100, 102, 165, 181, 185, 195, 332 metabòlit 44, 99, 195 metafase 65, 70, 71, 72, 74, 348 metamorfosi 161, 170, 171, 172, 174 metàstasi 78, 79, 83, 368 metazous 137 metil 186, 199, 201 metilació 335, 368 metionina 213, 214, 342 micel·la 196 microbi 17, 38, 132, 375, 381, 384, 390, 394, 397 microfotografia 249 microcòs 45 microgàmeta 137, 145, 146 microgenasa 384 micrografia 63 microorganisme 47, 56, 81, 110, 112, 116, 120, 132, 182, 212, 306, 310, 374, 381, 385, 390 micròpil 164
microscopi 7, 8, 9, 10, 11, 12, 13, 15, 16, 17, 22, 23, 24, 25, 26, 27, 28, 32, 41, 44, 48, 49, 51, 52, 53, 55, 56, 57, 59, 61, 63, 72, 73, 76, 81, 82, 87, 88, 107, 121, 139, 145, 155, 162, 165, 175, 177, 248, 261, 278, 308, 363 micròspora 73, 151 micròtom 14, 57 microtúbul 42, 55, 76 Miescher, Friedrich 238, 374 Milstein, César 375 mineralcorticoide 98 miofibril·la 106, 107 mioglobina 218, 223 miosina 106, 109, 212, 221 mitocondri 18, 24, 32, 34, 44, 45, 46, 47, 49, 54, 55, 81, 102, 106, 247, 248, 250, 261 mitoplasma 109 mitosi 46, 55, 63, 64, 69, 70, 71, 72, 73, 76, 77, 84, 86, 87, 88, 135, 136, 146, 147, 294, 348, 368, 371 molècula 35, 36, 37, 44, 45, 49, 50, 54, 64, 68, 69, 83, 90, 91, 92, 119, 123, 182, 183, 186, 188, 189, 190, 191, 192, 193, 194, 195, 196, 197, 198, 203, 206, 211, 215, 220, 226, 239, 240, 241, 243, 244, 245, 246, 247, 249, 250, 252, 258, 260, 308, 313, 318, 323, 333, 337, 341, 384, 391 monera 20, 24, 55, 148, 153, 222, 315, 320 monòcit 113, 119 monocotiledònia 163 monohibridisme 264, 265, 266, 268, 282, 300 monoica 138, 146 monòmer 41, 44, 45, 116, 188, 191, 195, 197, 198, 215, 222 mononucleòtid 188, 241 monoploïdia 330, 331 monosacàrid 188, 195 morfina 107, 108 morfogènesi 154, 157 mòrgan 300 Morgan, Thomas Hunt 279, 281 mòrula 70, 155, 156, 171 mosaic fluid 35 mucílag 39 mucosa 58 mucoviscidosi 350, 352, 365, 372 Mullis, Kary 375 múscul 107, 162 mutació 154, 282, 303, 313, 327, 328, 329, 331, 339, 340, 345, 352, 356, 361, 364, 367, 368, 388, 392, 393 mutagen 327
Nnanòmetre 122
Nägeli, Karl Wilhelm von 9 Nathans, Daniel 375, 378
neurohipòfisi 95, 96 neurohormones 95, 100 neurona 89, 90, 101, 102, 103, 104, 105, 106, 107, 109, 112, 121, 126, 162 neuropèptid 102 neurotensina 102 neurotransmissor 90, 91, 98, 101, 102, 107, 108, 109, 126 neutròfil 119
Nicolson, Garth 35 nicotina 107 ninhidrina 225, 229 nipagin 295, 297 Niremberg, Marshall 374 nitrit 232 noradrenalina 93, 98, 102 nucleasa 244 nucleocàpsida 122, 123 nuclèol 34, 64, 68, 71, 72, 73, 77, 86, 248 nucleoplasma 6, 67 nucleoproteïna 218 nucleosoma 84, 86, 248, 249, 251, 336 nucleòsid 239, 240, 325 nucleòtid 41, 49, 64, 191, 198, 238, 239, 240, 241, 242, 243, 244, 246, 247, 252, 255, 256, 257, 258, 261, 310, 312, 313, 315, 316, 317, 318, 323, 338, 339, 349, 350, 389, 391, 393 nucli 31, 32, 34, 37, 42, 43, 46, 47, 49, 55, 63, 64, 68, 69, 72, 77, 81, 84, 86, 101, 103, 106, 107, 137, 140, 151, 218, 224, 248, 257, 278, 294, 315, 317, 332, 337, 338, 386
OOchoa, Severo 323, 374 octàmer 248, 249, 251 oleoplast 46 oligoelement 184, 198 oligopèptid 208, 210 oligosacàrid 35 oncogen 79, 80, 83 oogoni 75 oosfera 137, 146 operó 333, 334 orceïna 87 organisme acel·lular 18 organització eucariota 7, 18 organització procariota 7, 18 organogènesi 160 orgànul 32, 34, 41, 42, 43, 44, 45, 46, 47, 48, 49, 50, 52, 53, 54, 64, 67, 70, 86, 224, 257 osmoregulació 192 osmosi 37, 40, 60, 61, 192 ossificació 97 osteòcit 162 ovari 97, 137, 144, 151, 163, 176, 265, 288 oviducte 143 ovípar 143, 146 ovoalbúmina 218, 315, 316
ovocèl·lula 137, 139, 140, 145, 151, 174 ovòcit 75, 81, 145, 386 ovogènesi 73, 75 ovoscopi 235 ovòtida 75 ovovivípar 143, 146 òvul 52, 73, 75, 77, 84, 137, 141, 142, 145, 148, 151, 163, 168, 174, 265, 269, 278, 285, 297, 366, 371, 385 ovulació 144 oxitocina 96, 128
P
paleontologia 183, 198 palinologia 57, 139, 146 pàncrees 97, 98, 99, 100, 112, 118 papilomavirus 82 paquitè 74 paracrina 90 parameci 16, 46, 59, 133, 168 paràsit 115, 116, 117, 122, 382 parathormona 98 paratiroide 97, 98, 158 parènquima 61, 165 paret cel·lular 32, 35, 37, 39, 40, 47, 71, 165 paret de cel·lulosa 39 Parkinson 103, 107 partenogènesi 135, 139, 146 Pasteur, Louis 374 patogen 123 pectina 39 peduncle 163 penicil·lina 117, 127, 399 pentapèptid 208 pentosa 239 pèptid 102, 114, 119, 195, 209, 226, 227, 317, 338, 339 peptidiltransferasa 342 perculació 206 permeasa 37, 41, 50, 211 peròxid 328 peroxisoma 32, 45, 55 pètal 141, 179 pinocitosi 37, 38, 41, 44 pirimidina 239, 244, 253 pistil 140, 141, 147, 151 pituïtària 126 placa neutral 160 placenta 97, 112, 116, 143, 363 planària 168 plàntula 383 plaqueta 119 plasma 99, 120, 218 plasmidi 247, 325, 327, 339, 349, 378, 379, 380, 383, 391, 399 plasmòcit 113 plasmodesma 38 plasmòlisi 37, 41, 192 plastidi 32, 33, 45, 46, 48, 55, 248 platihelmint 158 pleotropia 287 plúmula 163 pneumònia 122, 304
pol animal 156 pol vegetatiu 156, 157 poliheterozigot 269 polihidroxiflavili 201 polímer 195, 322 polimerasa 310, 312, 352, 375, 399 polimerització 195, 196, 196, 239 polinucleòtid 323 polipèptid 209, 210, 211, 215, 218, 309, 319 poliploïdia 331 poliribosoma 42, 48, 319 polisacàrid 39, 43, 86, 188, 190, 230, 307 polisoma 42, 55, 319 pol·linització 57, 140, 147 porfirina 218 porífer 158, 170 potassi 98, 104, 105, 190, 191, 232 Prebus, Albert F. 10 preservatiu 125 primasa 312 procariota 18, 19, 20, 24, 31, 32, 40, 44, 45, 47, 50, 55, 89, 135, 183, 191, 244, 247, 312, 314, 317, 342, 376, 396 profase 70, 71, 72, 74 progestagen 97 progesterona 97, 100, 128 prohormona 322 prolactina 96, 126 prolamina 218 proliferació cel·lular 154 propàgul 133, 136, 146, 174 prostotomat 158 protal·lus 151 proteïna 32, 34, 35, 36, 37, 39, 41,42, 43, 44, 45, 46, 48, 49, 51, 52, 54, 64, 68, 69, 70, 77, 79, 86, 91, 92, 93, 97, 98, 99, 104, 109, 114, 115, 116, 117, 119, 122, 123, 185, 187, 188, 189, 191, 194, 195, 198, 203, 204, 205, 209, 210, 211, 212, 213, 214, 215, 216, 217, 218, 219, 220, 221, 222, 223, 224, 225, 226, 227, 228, 236, 237, 239, 241. 243, 244, 247, 249, 250, 252, 253, 254, 257, 303, 307, 309, 314, 315, 317, 318, 319, 320, 322, 323, 324, 325, 332, 333, 334, 335, 352, 353, 368, 371, 373, 377, 380, 385, 392, 400 proteoglicà 39 proteoma 212 proteòmica 212 pròtid 204, 222 protó 193 protoctist 133, 137, 148, 153, 166 protonema 151 protooncongen 78, 79, 80, 83, 368 protoplast 46, 382, 383, 384, 398, 399 protostomat 172 protozou 9, 33, 46, 56 pseudomona 390 pseudòpoda 38 pseudopurina 253, 318
Puigdomènech, Pere 403 purina 239, 244, 253
Qquiasme 73, 74, 76, 77, 271, 272, 294 quimera 143 quimioteràpia 118 quinasa 70
radiació 79 radícula 163, 164 radiobiologia 12 radioteràpia 118 Ramon Vidal, Daniel 402, 403 Ramón y Cajal, Santiago 7, 16, 103 recessiu 265, 266, 268, 274, 283, 284, 289, 290, 292, 360, 369 recíproc 279, 280 recombinació 271, 272, 273, 276, 284, 294, 339
Redi, Francesco 22 reflex 105, 126 regeneració 135 renina 98 replicació 123, 310, 311, 312, 313, 316, 325, 326 repolarització 105 reproducció 20, 100, 131, 132, 133, 134, 135, 136, 144, 146, 147, 148, 149, 150, 153, 250, 271, 278, 282, 385, 400 resinífer 165 resistència insulínica 100 reticle endoplasmàtic 42, 48, 102, 106 reticle sarcoplasmàtic 107 retinoblastoma 369 retransposó 324 retroacció 126 retrotranscriptasa 122, 125 retrovirus 122 ribonucleasa 211, 218, 224, 244 ribonucleòtid 252, 253, 339 ribosa 49, 50, 188, 239, 240, 252 ribosoma 19, 32, 34, 42, 43, 45, 48, 49, 51, 55, 64, 86, 210, 252, 317, 319, 320, 322, 341 rizosema 165
Rostand, Jean 278 Ruska, Ernst 10, 16
sacarosa 177, 199
Sanger, Frederick 254, 375 saponificació 195, 196 sarcolemma 106, 109 sarcoma 122
sarcòmer 106, 107, 109 sarcoplasma 106, 109 Schleiden, Mathias Jakob 8, 9, 15, 21 Schröinger, Erwin 64 Schwann, Theodor 8, 9, 15, 21 secreció 94, 97, 124, 126 secretina 97
segmentació 155, 156 semen 124
Sèneca, Luci A. 8 sèpal 141, 179, 265 serina 205, 224 seroalbúmina 218 seropositiu 125 seroteràpia 126 serotonina 102
sèrum 112, 353, 354 sida 82, 121, 122, 124, 125, 127, 128, 323 Siebold 9 simbiosi 18 sinapsi 73, 76, 77, 90, 91, 101, 102, 106, 107, 108, 109, 122, 123 Singer, Ch. 23
Singer, S. Jonathan 35 sistema endocrí 89, 93, 94, 100 sistema immunològic 89, 97, 110, 111, 112, 114, 116, 117, 118, 120, 121, 122, 389 sistema limfàtic 97, 122 sistema nerviós 89, 92, 93, 95, 101, 103, 105, 107, 108, 160 Smith, Hamilton 375, 378 sociobiologia 166 sodi 98, 104, 105, 109, 185, 191, 198, 199, 232 solenoide 249, 251 somatotropina 93, 96, 126 Spemann, Hans 386
Stahl, Franklin 310, 311, 325 Strasburger, Edward 278 Strasburger, Walter 10 súber 165 suprarenal 97, 98 Sutton, Walter S. 277 Swammerdam, Jan 9, 22 T
Tatum, Edward Lawrie 309 taxonomia 183, 198 Taylor, J. H. 310, 326 tegument 163, 164 teixit cel·lular 21 teixit epitelial 58, 79 telofase 70, 71, 72, 74 telòmer 65, 67, 86
Temin, Howard 323, 324 teoria cel·lular 7, 8, 11, 21 testicle 98, 100, 137, 176, 288 testosterona 92, 100, 126, 128 tetraciclina 342 tetrapèptid 209
Tijo, Joe H. 347 tilacoide 46, 48, 54 tim 97, 98, 100, 111, 126, 158 timidina 310 timina 239, 244, 256, 259, 260, 392 timol 225 timosina 97 Tinbergen, Nikolaas 166 tiroide 92, 94, 96, 97, 98, 100, 126, 158, 218 tirosina 225, 227, 339 tirosomia 364 tiroxina 93, 94, 97, 100, 101 tradescància 29 transcriptasa 122, 323, 324, 325, 339 transducció 20, 379 transformació 20, 305, 306, 379 transició 328, 331 translocació 330, 331 transmissió 124, 125 transposasa 324, 339 transposó 324, 327, 339 transversió 328, 331 trasplantament 118, 127, 397 trastorn 83, 94, 100, 121, 125, 126 treonina 205, 213, 214 triglicèrid 224 triiodotironina 97 tripèptid 209, 224 triploblàstic 158, 170 tripsina 225 triptòfan 213, 214, 320, 333, 334 trombina 212 tropomiosina 106 troponina 106 tub digestiu 97, 98, 164 tub neutral 160 tuberculosi 38, 122 túbul 107 tubulina 212, 221 tumor 78, 79, 80, 81, 328, 368 turgència 37, 39, 41, 192
Uultraestructura cel·lular 18
uracil 239, 259, 260, 339, 341 úter 82, 83, 97, 385, 387
vacunació 111
vacúol 37, 38, 41, 43, 46, 47, 55, 165 vacuoma 43, 48 valina 213, 214, 224, 392 vas sanguini 99, 212 vasoconstrictor 96 vasopressina 96, 126, 128 Venter, Craig 338, 349, 396 verticil 141 vesícula 46, 47, 102, 106 Vicente, Miguel 402
Virchow, Rudolf 8, 9, 16, 70 virus 18, 79, 82, 83, 115, 121, 122, 123, 124, 125, 127, 128 viscositat 192 vitel 143, 155, 156 vitel·lina 218 vivípar 143, 146 vorticel·la 59
Waddington, Conrad E. 335 Waldeyer, Heinrich 278 Watson, James Dewey 238, 244, 252, 253, 260, 309, 374 Wilkins, Maurice 238 Wilmut, Ian 386
xantofil·la 46 xenotrasplantament 118, 127, 388, 398 xilema 165
zeïna 218 zel 146, 166 zigot 20, 63, 70, 84, 136, 140, 142, 145, 146, 147, 148, 149, 154, 155, 156, 157, 171, 176, 332, 361, 371, 387 zigotè 74
Zworykin, Vladimir Kosma 10
ANGUITA, FRANCISCO: Origen e historia de la Tierra. Alcorcón, Rueda, 1988.
ASIMOV, ISAAC: Enciclopedia biográfica de ciencia y tecnología. Madrid, Alianza Editorial, 1987.
BENÍTEZ ORTIZ, JAVIER: ¿Por qué nos parecemos a nuestros padres? Madrid, Temas de Hoy, 1997.
BOSCHDELA TRINXERIA, CARLES: L’hereu Noradell. Barcelona, Península, 1991.
DARWIN, CHARLES: L’origen de les espècies. Barcelona, Edicions 62, 1983.
DARWIN, CHARLES: L’origen de l’home. Edicions Científiques Catalanes, 1964.
DIDEROT, DENIS: «Converses amb D’Alembert». Dins: Escrits filosòfics. Barcelona, Edicions 62, 1983.
DUVE, CHRISTIANDE: La célula viva. Barcelona, Premsa Científica, 1988.
FERNÁNDEZ NONÍDEZ, JOSÉ: La herencia mendeliana. Madrid, Espasa Calpe, 1935.
FOLCH, RAMON (dir.): Biosfera. Barcelona, Enciclopèdia Catalana (10 vol.).
FOLCH, RAMON: Comprendre la natura. Barcelona, Barcino, 1990.
FOLCH, RAMON: Història Natural dels Països Catalans. Barcelona, Enciclopèdia Catalana, 1985-1992.
GOULD, STEPHEN JAY: El libro de la vida. Barcelona, Editorial Crítica, 1999.
HALL, D. I K. RAO: Fotosíntesis. Barcelona, Omega, 1984.
JACOB, FRANÇOIS: La lógica de lo viviente. Barcelona, Laia, 1977.
LAMARCK, JEAN-BAPTISTE: Filosofía zoológica. Barcelona, Alta Fulla, 1986.
LEHNINGER, A. L.: Principios de bioquímica. Barcelona, Omega, 1993.
LÓPEZ PIÑERO, JOSÉ M.: Diccionario histórico de la ciencia moderna en España. Barcelona, Edicions 62, 1983.
LURIA, SALVATORE: 36 Lecciones de Biología. Madrid, Blume, 1979.
MARGALEF, RAMON: Ecologia. Barcelona, Servei del Medi Ambient, 1985.
MARGALEF, RAMON: Planeta azul, planeta verde. Barcelona, Labor, 1992.
MARGULIS, LYNNI DORION SAGAN: Què és la vida? Barcelona, Proa, 1997.
MENDEL, GREGOR JOHANN: Experiments d’hibridació en plantes. Madrid, Alhambra, 1978.
PATTERSON, COLIN: La evolución. Barcelona, Fontalba, 1985.
SCHRÖDINGER, ERWIN: ¿Qué es la vida? Barcelona, Tusquets, 1984.
SCHUMACHER, WALTER: Tratado de Botánica. Barcelona, Omega, 1989.
SZENT-GYÖRGYI, ALBERT: Bioelectrònica. Nova York, Academia Press, 1968.
VERNADSKI, VLADIMIR IVANOVITX: La biosfera. Madrid, Visor, 1997.
WATSON, J. I F. CRICK: «L’estructura molecular dels àcids nucleics» és traduït de Nature (1953).
AquestllibrecorresponalprimercursdelamatèriadeBiologiadelamodalitatdelBatxilleratdeCiènciesiTecnologia, formapartdelProjecteEditorialdeBarcanova,ihaestatelaboratd’acordambl’ordenaciócurricularestablerta pelDepartamentd’EducaciódelaGeneralitatdeCatalunya.
Coordinaciótècnica:MarcelPlanas
Edició:BertaFerreriMauroGiani
Maquetació:AdvancedCreativity
Dissenyd’interiors:MarionaRibó Dissenydelacoberta:DepartamentdeProjectes
Elaboraciódelacoberta:LauraRodríguez
Fotografiesdelacoberta:AGE-Fotostock,J.M.Barres
Fotografies:A1PIXLtd.,AGE-Fotostock,Aisa,O.Alamany,Album,Asa,J.M.Barres,BibliotecadeCatalunya, Bioflash,S.Calvet(UAB)(cortesia),Corbis/Cover,M.Durfort,EuropaPress,X.Ferrer,Firo-Foto,FototecaStone, CDGallery,GarcíaValero,Gerda,GettyImages,C.Guixé,Index,A.Masó,Micros,Obac,Oronoz,Prisma, ServeideMedicinadelaReproducciódel’InstitutUniversitariDexeus(cortesia),Sincronia,Super-Stock, J.Trueba-MadridScientificFilms,S.L.,Ll.Valcàrcel,J.Vidal,VisionAgency,Zardoya, M.PérezdeTudela/M.Steel/ArxiuAnayaiArxiuBarcanova.
©2008,JosepCuello,AntoniDomíngueziJordiPons ©AleixPonsiXavierBouperlesil·lustracions ©2008d’aquestaedició:EditorialBarcanova,SA RosaSensat,9-11,4aplanta.08005Barcelona Telèfon932172054.Fax932373469 barcanova@barcanova.cat/www.barcanova.cat
Segonaedició:maigde2010
Sisenaimpressió:maigde2018
DLB.14096-2010
ISBN:978-84-489-2340-2
PrintedinSpain
Adaptaciódelllibreperaalumnescecsoambbaixavisió
EditorialBarcanovail’ONCEmantenenunacorddecol·laboraciómitjançantelqualelscentres educatiusquetinguinalumnescecsoambproblemàtiquesseveresdebaixavisiópodenposar-seen contacteambel CentredeRecursosEducatiusONCEdeBarcelona peral’adaptaciód’aquestllibre. PercontactarambelCREdel’ONCEpodeufer-hopertelèfonobépercorreuelectrònic.
Reservatstotselsdrets.Elcontingutd’aquestaobraestàprotegitperlallei,queestableixpenesdepresóimultes, amésdelesindemnitzacionscorresponentsperdanysiperjudicis,peraaquellsquereproduïssin,plagiessin ocomuniquessinpúblicament,totalmentoparcialment,unaobraliterària,artísticaocientífica,olaseva transformació,interpretacióoexecucióartísticafixadaenqualsevoltipusdesuportocomunicada perqualsevolmitjàsensel’autoritzaciópreceptiva.
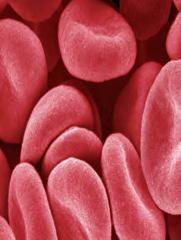
ISBN978-84-489-2340-2